Biol Psychiatrie. 2008 Dec 1; 64 (11): 941-50. Epub 2008 Jul 26.
Teegarden SL, Nestler EJ, Bale TL.
Zdroj
Katedra biologie živočichů, University of Pennsylvania, Philadelphia, PA 19104-6046, USA.
Abstraktní
POZADÍ:
Citlivost na odměnu byla zahrnutá jako předisponující faktor pro chování související s užíváním drog a přejídání. Základní mechanismy přispívající k odměňování citlivosti jsou však neznámé. Předpokládali jsme hypotézu, že dysregulace signalizace dopaminu může být hlavní příčinou zvýšené citlivosti na odměnu, díky čemuž by odměňující podněty mohly vést k normalizaci systému.
Metody:
Použili jsme genetický myší model se zvýšenou citlivostí na odměnu, myší s nadměrnou expresí Delta FosB, abychom mohli zkoumat změny odezvy v odezvě na chutnou stravu s vysokým obsahem tuku. Markery signalizace odměny u těchto myší byly vyšetřovány jak v zásadě, tak po 6 týdnech chutné dietní expozice. Myši byly vyšetřeny v behaviorálním testu po vysazení s vysokým obsahem tuku, aby se posoudila zranitelnost tohoto modelu k odstranění odměňujících podnětů.
Výsledky:
Naše výsledky demonstrují změněnou aktivaci drah odměny v okruhu nucleus accumbens-hypothalamicko-ventrální tegmentální oblasti v důsledku nadměrné exprese Delta FosB v nucleus accumbens a striatálních oblastech . Hladiny fosforylovaného vázajícího proteinu cyklického adenosinmonofosfátu (cAMP) (pCREB), neurotrofického faktoru odvozeného z mozku (BDNF) a fosfoproteinu regulovaného dopaminem a cyklickým adenosinmonofosfátem s molekulovou hmotností 32 kDa (DARPP-32) v nucleus accumbens byly u myší Delta FosB sníženy, což naznačuje sníženou dopaminovou signalizaci. Šest týdnů konzumace stravy s vysokým obsahem tuků tyto rozdíly zcela zmírnilo a odhalilo silnou schopnost odměňování chutné stravy. Myši Delta FosB také vykazovaly významné zvýšení pohybové aktivity a reakcí souvisejících s úzkostí 24 hodin po vysazení stravy s vysokým obsahem tuků.
Závěr:
Tyto výsledky prokazují základní citlivost na změny v odměně související s dysregulací signalizace Delta FosB a dopaminu, kterou lze normalizovat chutnou stravou a která může být predisponujícím fenotypem u některých forem obezity.
Úvod
Navzdory našim rostoucím znalostem o nervových systémech, které řídí chuť k jídlu a pocit sytosti, míra obezity ve Spojených státech nadále roste. Současná farmakologická léčba má omezenou účinnost a modifikace chování trpí minimální dlouhodobou spoluprací (1). Konzumace kaloricky hustých, chutných potravin byla spojována se změnami v drahách stresu a odměny v mozku, což naznačuje, že odměňující vlastnosti těchto potravin mohou potlačit signály energetické bilance (2-4). Potraviny s vysokým obsahem tuku fungují jako přirozené odměny, aktivují centra odměny v mozku podobným způsobem jako drogy, a jako takové se používají v paradigmatech samopodávání (5-8). Je tedy pravděpodobné, že chování a motivace k přejídání a zneužívání drog sdílejí společné základní mechanismy, což potenciálně otevírá nové možnosti léčby obou onemocnění.
Při studiu vztahu mezi chutnými potravinami a drahami regulujícími odměnu a stres v mozku jsme dříve identifikovali molekulární a biochemické markery snížené odměny a zvýšeného stresu po vysazení chutné stravy s vysokým obsahem tuku (HF). Podobně jako u drog, i vystavení chutné stravě v našich studiích vedlo ke zvýšeným hladinám transkripčního faktoru ΔFosB v nucleus accumbens (NAc), centrální struktuře odměny v mozku (9, 10) . Myši, které indukovatelně nadměrně exprimují ΔFosB, vykazují zvýšenou instrumentální reakci na odměnu v potravě (11), což z nich činí cenný nástroj pro zkoumání role citlivosti na odměnu a dlouhodobé dysregulace systému odměny v molekulárních a biochemických reakcích na chutnou stravu.
V této studii jsme použili myši s nadměrnou expresí ΔFosB ke zkoumání dlouhodobých změn markerů odměny v neuroobvodech NAc-hypotalamus-ventrální tegmentální oblast (VTA) v reakci na stravitelnou HF dietu. Na základě předchozích studií u těchto myší citlivých na odměnu jsme předpokládali, že změny v citlivosti na odměnu vyvolané ΔFosB zahrnují dysregulaci dopaminové signalizace, která je výsledkem zpětné vazby NAc do VTA. Dále jsme předpokládali, že vystavení přirozené odměně v podobě energeticky husté HF diety by pak normalizovalo dopaminergní systém u těchto myší, což by vedlo k přehnané reakci na stres z vysazení z této HF diety . Unikátní aspekt využití chutné stravy jako odměňující látky nám umožňuje zahrnout hypotalamické vstupy do obvodů odměny ve fenotypu, který může být prediktivní pro populaci predisponovanou k obezitě rezistentní na léčbu. Abychom tuto hypotézu ověřili, studovali jsme markery dopaminové neurotransmise, včetně pCREB, BDNF a DARPP-32 v NAc a tyrosinhydroxylázy a dopaminového transportéru ve VTA po expozici HF. Zkoumali jsme také specifické markery energetické bilance, o kterých je známo, že ovlivňují výdej dopaminu, včetně leptinových a orexinových receptorů ve VTA a exprese orexinu v laterálním hypotalamu.
Materiály a metody
Zvířata
Mužské bitransgenní myši, které indukovatelně nadměrně exprimují AFosB v neuronech pozitivních na dynorfin v NAc a dorzálním striate (Kelz et al., 1999), byly vytvořeny na smíšeném pozadí (ICR: C57Bl6 / SJL) na University of Texas Southwestern Medical Center a udržovány a udržovány. testován na University of Pennsylvania. Všechny myši byly udržovány na doxycyklinu (100 μg / ml v pitné vodě) až do příjezdu na University of Pennsylvania. Pro vyvolání nadměrné exprese byl doxycyklin odstraněn (n = 23) (12). Kontrolní myši (n = 26) pokračovaly v přijímání léčiva. Myši byly zařazeny do dietních skupin osm týdnů po odstranění doxycylinu, kdy bylo prokázáno, že exprese dosahuje maximálních hladin (13). Myši byly udržovány na cyklu 12: 12 světlo-tma (světla na 0700) s potravou a vodou dostupnou ad libitum. Všechny studie byly prováděny podle experimentálních protokolů schválených Institutem pro péči a péči o zvířata na univerzitě v Pensylvánii a všechny postupy byly prováděny v souladu s institucionálními směrnicemi.
Dietní expozice
Myši byly udržovány na chow domu (n = 16) nebo umístěny na HF (n = 16-17) po dobu šesti týdnů. House chow (Purina Lab Diet, St. Louis, MO) obsahoval 4.00 kcal / g, sestávající z 28% proteinu, 12% tuku a 60% sacharidů. HF dieta (Research Diets, New Brunswick, NJ) obsahovala 4.73 kcal / g, sestávající z 20% proteinu, 45% tuku a 35% sacharidů.
Biochemie a genová exprese
Myši byly analyzovány po šesti týdnech vystavení dietě. Mozky byly odstraněny z lebky a buď zmrazené celé na suchém ledu, nebo NAc disected (přibližně 0.5 - 1.75 mm od bregma, v hloubce 3.5 - 5.5 mm) a zmrazené v kapalném dusíku. Tkáň byla skladována při -80 ° C až do testování.
Biochemické analýzy
Metody pro Western bloty jsou popsány v doplňkových materiálech. Použité protilátky byly: Cdk5, CREB a BDNF (1: 500, Santa Cruz Biotechnology, Santa Cruz, CA) a fosfo-CREB (pCREB) (Ser 133) (1: 500, Cell Signaling Technology, Danvers, MA).
Receptorová autoradiografie
Podrobné metody autoradiografie jsou popsány v doplňkových materiálech. Použité ligandy byly 2 nM H3 - SCH 23390 a 5 nM H3 - spiperon (PerkinElmer, Boston, MA).
In situ hybridizace
Zpracování tkáně a hybridizace byly provedeny tak, jak bylo popsáno výše (14). Sonda DARPP-32 byla laskavě poskytnuta P. Greengardem (Rockefeller University) a sondou orexinů J. Elmquistem (University of Texas Southwestern Medical Center). Sklíčka testovaná na DARPP-32 byla aplikována na film po dobu 3 dnů a sklíčka testovaná na orexin byla aplikována na film po dobu 4 dnů. Kvantifikace filmových obrazů byla prováděna tak, jak bylo popsáno výše (10).
QRT-PCR
RNA byla izolována z VTA a exprese jednotlivých genů byla testována za použití TaqMan genových expresních testů (Applied Biosystems, Foster City, CA). Podrobné metody a statistické analýzy lze nalézt v doplňkových materiálech.
Behaviorální analýzy
Za účelem zkoumání účinků citlivosti odměny na změny chování vyvolané dietou byla podskupina myší odebrána z HF po čtyřech týdnech expozice a vrácena do domu chow (n = 9 kontrola, n = 8 AFosB). Dvacet čtyři hodin po vysazení byly myši vystaveny testu s otevřeným polem v souladu s naším dříve publikovaným paradigmatem dietního stažení (10). Stručně řečeno, myš byla umístěna do středu přístroje s otevřeným polem a monitorována po dobu pěti minut. Byly změřeny celkové řádkové kříže, fekální byli, čas ve středu a kříže do centra.
Statistika
Všechna data kromě Western blotů byla analyzována pomocí obousměrné ANOVA následované Fisherovým PLSD testem s ošetřením doxycyklinem (exprese AFosB) a dietními podmínkami jako nezávislými proměnnými. U analýz RT-PCR byla použita snížená hodnota P ke korekci vícenásobného srovnání v rámci skupin příbuzných genů (viz doplňkové materiály). Western bloty byly analyzovány pomocí studentova t-testu s léčbou doxycyklinem jako nezávislé proměnné, přičemž byly porovnány optické hustoty ve stejném blotu. Všechna data jsou uvedena jako průměr ± SEM.
výsledky
Základní biochemické rozdíly
Za účelem objasnění molekulárních drah, které jsou základem zvýšené citlivosti odměn u myší s nadměrnou expresí AFosB, byly v NAc zkoumány hladiny několika klíčových signálních molekul. Existoval trend ke zvýšeným hladinám Cdk5 v NAc myší ΔFosB ve srovnání s kontrolními zvířaty žijícími na spolubydlících udržovaných na doxycyklinu (F = 5.1, P = 0.08; obr. 1A). ΔFosB myši exprimovaly významně snížené hladiny pCREB (F = 7.4, P <0.05; obr. 1B), jakož i celkové hladiny CREB (F = 5.4, P = 0.05; obr. 1C). Významné snížení BDNF bylo také pozorováno u NAc myší AFosB (F = 10.6, P <0.05; obr. 1D).
Obrázek 1
Myši nadměrně exprimující AFosB vykazovaly biochemické markery snížené signalizace dopaminu v NAc
Příjem potravy a tělesná hmotnost na dietu s vysokým obsahem tuku
Dále jsme zkoumali účinky přirozeně odměňující se HF stravy na změny v signálních molekulách u myší s nadměrnou expresí ΔFosB. Nebyly zjištěny žádné rozdíly mezi myší ΔFosB a kontrolami v příjmu potravy ani v domě, ani v HF. Došlo však k celkovému snížení kalorického příjmu normalizovaného na tělesnou hmotnost při vystavení HF, které bylo specifické pro myši ΔFosB (F = 11.2, P <0.01; obr. 2A). Na konci šesti týdnů expozice dietě myši, které dostávaly HF, vážily významně více než myši na dietě s chow (F = 17.2, P <0.001) a ΔFosB myši vážily celkově méně než kontroly (F = 5.6, P <0.05; obr. 2B). Tento účinek byl specifický pro rozdíly mezi skupinami na krmné stravě (P <0.05).
Obrázek 2
Nadměrně exprimované myši AFosB nevykazovaly žádné rozdíly v příjmu potravy ani v potravě s krmivem, ani s vysokým obsahem tuku (HF)
Biochemické rozdíly na dietě s vysokým obsahem tuku
Aby se určilo, jak mohou být bazální rozdíly v signalizaci NAc změněny HF dietou, byly u zvířat, které dostávaly šest týdnů HF, zkoumány stejné signální proteiny studované na výchozích hodnotách. V hladinách Cdk5 nebyly žádné významné rozdíly (obr. 3A). Hladiny pCREB a celkového CREB se po šesti týdnech HF již nelišily (Obr. 3B, C). Hladiny BDNF byly signifikantně zvýšeny u AFosB myší po šesti týdnech HF expozice (F = 6.5, P = 0.05; Obr. 3D).
Obrázek 3
Dieta s vysokým obsahem tuku (HF) zlepšila signální rozdíly pozorované u NAc myší s nadměrnou expresí AFosB
Autorádiografie dopaminového receptoru
Použili jsme autoradiografii receptoru k posouzení, zda změny vyvolané ΔFosB v signalizaci dopaminu v NAc souvisejí se změnami v expresi dopaminového receptoru (obr. 4A). Zdá se, že strava s vysokým obsahem tuku mírně zvýšila hustotu vazby dopaminového receptoru Dl (P = 1) a tento rozdíl byl větší u myší AFOSB (obr. 0.14B). Rovněž byl trend směrem ke zvýšení vazebné oblasti D4 po HF (P = 1) a post hoc testování ukázalo, že to je významné u myší AFosB (P <0.06; obr. 0.05C). Na rozdíl od D4 receptorů, žádné změny v hustotě vazby na D1 receptory (kontrolní krmivo = 2 ± 97.6, kontrolní HF = 6.9 ± 101.1, ΔFosB krmivo = 8.2 ± 91.6, ΔFosB HF = 1.0 ± 94.8) nebo vazebná oblast (kontrolní krmivo = 9.5 ± 47.3, kontrolní HF = 3.4 ± 53.8, ΔFosB chow = 6.0 ± 51.9, .3.7FosB HF = 49.0 ± 3.3) byly pozorovány v NAc.
Obrázek 4
Dieta s vysokým obsahem tuku (HF) vedla ke změnám vazby D1 dopaminového receptoru a exprese DARPP-32 v nucleus accumbens (NAc) myší s nadměrnou expresí AFosB
Exprese DARPP-32 v NAc
Hybridizace in situ byla použita ke stanovení úrovní exprese DARPP-32 v NAc (obr. 4D). Dieta s vysokým obsahem tuku významně zvýšila expresi DARPP-32 v této oblasti mozku (F = 5.1, P <0.05) a došlo k významné interakci mezi dietou a expresí ΔFosB (F = 8.9, P <0.05), přičemž myši ΔFosB vykazovaly větší dietou vyvolaná změna (obr. 4E). Základní rozdíl v expresi DARPP-32 mezi kontrolní a myší ΔFosB byl odhalen post hoc testováním (P <0.01), stejně jako významné zvýšení exprese DARPP-32 u myší ΔFosB na HF (P <0.01).
Exprese genu ve VTA
QRT-PCR byla použita k vyhodnocení změn v genové expresi ve VTA se zaměřením na několik klíčových genů dříve zapojených do regulace odměny. Všechny vzorky byly normalizovány na p-aktin. Aby se zajistilo, že exprese β-aktinu nebyla změněna ošetřením, byl proveden samostatný test pro srovnání p-aktinu s druhou vnitřní kontrolou, GAPDH. Nebyly zjištěny žádné významné rozdíly v expresi β-aktinu (hodnoty ΔCT, β-aktin - GAPDH: kontrolní dávka = 2.29 ± 0.21, kontrolní hodnota HF = 2.01 ± 0.04, hodnota osFosB = 2.32 ± 0.49, ΔFosB HF = 2.37 ± 0.10).
Byl pozorován trend interakce mezi expresí ΔFosB a dietní léčbou pro expresi tyrosinhydroxylázy (F = 3.6, P <0.06; obr. 5A). Zdálo se, že šest týdnů expozice HF snižuje expresi tyrosinhydroxylázy u kontrolních myší a zvyšuje expresi u myší AFOSB. Byla pozorována významná interakce mezi expresí ΔFosB a expozicí dietě pro expresi dopaminového transportéru (F = 6.7, P <0.03; obr. 5B). Podobně jako u tyrosinhydroxylázy expozice HF snížila expresi dopaminového transportéru u kontrolních myší a významně zvýšila expresi u myší ΔFosB (P <0.05). Základní rozdíl v expresi dopaminového transportéru mezi kontrolní a ΔFosB myší nedosáhl významnosti (P = 0.16), ale po 6 týdnech HF, ΔFosB myši exprimovaly významně zvýšené hladiny dopaminového transportéru ve srovnání s kontrolami (P <0.05).
Obrázek 5
Expozice s vysokým obsahem tuku (HF) a exprese AFosB vedly ke změnám v expresi řady klíčových molekul ve VTA
Existoval trend indikující účinek zvýšené exprese ΔFosB na snížení hladin TrkB ve VTA (F = 5.7, P <0.04; obr. 5C). Ačkoli nebyly zjištěny žádné hlavní účinky na expresi κ-opioidního receptoru, byl zde trend směrem ke snížené expresi u myší AFOSB (P = 0.08; obr. 5D). Exprese leptinového receptoru byla také stanovena ve VTA. Byl nalezen významný účinek expozice dietě (F = 6.1, P <0.03), přičemž HF významně snižoval hladiny leptinového receptoru ve VTA jak u AFOSB, tak u kontrolních myší (obr. 5E). Rovněž byla zkoumána exprese orexinového receptoru 1 ve VTA. Došlo k významnému účinku stravy na expresi orexinového receptoru (F = 9.0, P <0.02), přičemž myši vystavené HF exprimovaly vyšší hladiny ve VTA (obr. 5F). U myší ΔFosB byl také trend k expresi celkově vyšších úrovní receptoru orexinu 1 v této oblasti mozku (P <0.05).
Exprese orexinu v laterálním hypotalamu
Měřili jsme hladiny orexinu v laterálním hypotalamu, původ orexinergní inervace VTA, in situ hybridizací (obr. 6A). Došlo k významné interakci mezi expresí ΔFosB a expozicí dietě na expresi orexinu (F = 9.1, P <0.01), přičemž HF významně zvyšoval hladiny orexinu u kontrolních myší (P <0.05) a snižoval expresi u myší osFosB (obr. 6B). Ačkoli nebyly zjištěny žádné významné rozdíly v expresi orexinu v bazálním stavu, po 6 týdnech HF, ΔFosB myši exprimovaly významně snížené hladiny orexinu ve srovnání s kontrolami (P <0.05).
Obrázek 6
Dieta s vysokým obsahem tuku (HF) měla rozdílné účinky na expresi orexinu v kontrolních myších (Ctrl) a AFosB.
Analýzy chování
Aby se vyhodnotily změny vzrušení a emocionalita způsobené změnou stravy, byly myši vystaveny testu v otevřeném poli 24 hodin po vysazení vysokofrekvenční stravy (10). Celkové křížení čar, které bylo hodnoceno jako měřítko vzrušení, bylo významně ovlivněno expresí AFosB (F = 6.6, P <0.05) a dietou (F = 4.6, P <0.05; obr. 7A). ΔFosB myši byly v novém prostředí aktivnější než kontroverzní a post hoc testování ukázalo, že myši odebrané z HF byly významně aktivnější než ty, které byly vystaveny chow (P <0.05). Fekální boli byly počítány jako míra chování podobného úzkosti (10). Došlo k hlavnímu účinku exprese AFosB (F = 10.2, P <0.01), přičemž myši s nadměrnou expresí AFosB produkující více fekálních boli v novém prostředí, zejména ve skupinách domácí chow a HF odběru (obr. 7B). ΔFosB myši udržované na HF dietě produkovaly méně fekálních bolů než ty, které byly udržovány na jídle a ty, které byly odebrány 24 hodin před testem. Ukázalo se, že kontrolní myši nebyly ovlivněny dietou. Nebyly zaznamenány žádné významné účinky exprese ΔFosB ani stravy na čas strávený ve středu otevřeného pole (kontrolní krmivo = 14.5 ± 3.1 s, kontrolní HF = 18.0 ± 3.2 s, kontrolní W / D = 15.4 ± 1.9 s, krmivo ΔFosB = 16.9 ± 2.4 s, ΔFosB HF = 13.1 ± 3.9 s, ΔFosB W / D = 19.8 ± 2.6 s).
Obrázek 7
Myši nadměrně exprimující AFosB byly citlivější k účinkům abstinence s vysokým obsahem tuku (HF)
Diskuse
V léčbě obezity je kriticky nutné identifikovat faktory, které ovlivňují náchylnost k přejídání a přibírání na váze. Mozkové dráhy odměny hrají důležitou roli v motivaci a reakci na chutné potraviny a změny ve stravování (6, 10, 15, 16). Vzhledem k tomu, že orexigenní a anorexigenní signály mohou přímo ovlivňovat signalizaci odměny prostřednictvím okruhu hypotalamus-VTA-NAc, může objasnění genů reagujících na energeticky bohatou chutnou stravu v centrech odměny poskytnout nové terapeutické cíle v léčbě obezity (17, 18). Proto jsme zkoumali biochemické a molekulární markery signalizace odměny a energetické rovnováhy podél okruhu hypotalamus-VTA-NAc v reakci na HF dietu u myší s nadměrnou expresí ΔFosB jako model zvýšené citlivosti na změny v odměně (13, 19, 20) a behaviorální citlivosti po vysazení diety. Předpokládali jsme, že bazální dysregulace dopaminové signalizace u myší ΔFosB by byla normalizována odměňujícími účinky HF diety, zahrnujícími průnik signálů energetické rovnováhy a dopaminového systému.
Abychom prozkoumali markery svědčící o dysregulaci dopaminové signalizace v NAc, zkoumali jsme hladiny receptorů D1 a následné efektory. Ačkoli nebyly zjištěny žádné významné rozdíly ve vazbě na receptor D1, u myší s genem ΔFosB byl pozorován trend expozice HF ke zvýšení vazebné plochy . To je zajímavé, protože indukce ΔFosB léky a přirozenými odměnami se zdá převládat u dynorfin-pozitivního podtypu středně ostnatých neuronů, které primárně exprimují receptory D1 (9, 21). Hladiny cíle dopaminové signalizace pCREB v downstreamu byly u myší ΔFosB významně sníženy, což podporuje sníženou aktivaci receptorů D1 v této oblasti mozku (22, 23). Je zajímavé, že jsme u myší ΔFosB také detekovali významný pokles celkových hladin CREB, což naznačuje další sníženou kapacitu pro transdukci dopaminového signálu, která může být sekundární k zpětné vazbě vyplývající z prodlouženého poklesu pCREB (24). Exprese BDNF je regulována pCREB, je zvýšena s aktivací D1 a je důležitým mediátorem neuroplasticity související s odměnou v NAc (25, 26). V souladu s tím jsme zjistili významný pokles proteinu BDNF v NAc myší ΔFosB.
Všechny středně dlouhé ostnaté neurony v NAc exprimují DARPP-32 (27). Jeho četné následné efektory z něj činí klíčového hráče v drahách odměny (28) a je spojován s drogovou závislostí a dalšími poruchami zahrnujícími dopaminový systém, včetně afektivních poruch a schizofrenie (27, 29). U NAc myší ΔFosB jsme detekovali výrazné bazální snížení exprese DARPP-32. Exprese DARPP-32 je regulována BDNF, a proto může snížená exprese přímo souviset se snížením hladin BDNF detekovaným u myší ΔFosB (27, 29, 30). I mírné změny ve stavu fosforylace DARPP-32 mohou vést k podstatným změnám v intracelulární signalizaci v rámci NAc (27). Předchozí studie neprokázaly žádnou změnu proteinu DARPP-32 u myší s genem ΔFosB po 12týdenním vysazení doxycyklinu, když bylo provedeno širší striatální hodnocení (31), což naznačuje, že účinky ΔFosB na DARPP-32 mohou být časově a regionálně specifické.
Předpokládali jsme, že dramatické snížení indexů dopaminové signalizace v NAc myší ΔFosB pravděpodobně zahrnuje změny v dopaminových projekčních neuronech VTA, přestože ΔFosB není v těchto neuronech nadměrně exprimován . Proto jsme zkoumali expresi genů souvisejících s dopaminem ve VTA, včetně tyrosinhydroxylázy a dopaminového transportéru. Hladiny tyrosinhydroxylázy a dopaminového transportéru pozitivně korelují s produkcí dopaminu. U myší ΔFosB byl pozorován trend ke snížené tyrosinhydroxyláze a významnému snížení dopaminového transportéru, což je v souladu s dysregulací dopaminové signalizace v NAc . Vzhledem k tomu, že toto bazální snížení genů souvisejících s dopaminem ve VTA myší ΔFosB pravděpodobně odráží změněnou zpětnou vazbu z NAc během dlouhodobé nadměrné exprese ΔFosB , zkoumali jsme expresi BDNF receptoru, TrkB, jako možný mechanismus zpětné vazby NAc do VTA (32). Podobně jako tyrosinhydroxyláza a dopaminový transportér, i exprese TrkB vykazovala trend k bazálnímu snížení u myší ΔFosB, což však nedosáhlo statistické významnosti po korekci na vícenásobné srovnání. Komplex BDNF-TrkB může být transportován retrográdně a působit v rámci VTA, ovlivňovat lokální genovou expresi a podporovat růst a udržování buněk (33). Aktivace presynaptického TrkB v NAc pomocí BDNF může dále přímo stimulovat dopaminovou neurotransmisi (32), což podporuje základní snížení dopaminové signalizace u těchto myší.
Aktivace κ-opioidních receptorů dynorfinem reguluje dopaminovou signalizaci a je dalším mechanismem, kterým NAc poskytuje zpětnou vazbu do VTA (34). Zjistili jsme, že exprese κ-opioidních receptorů ve VTA vykazuje u myší ΔFosB tendenci ke snížení. Vzhledem k tomu, že nadměrná exprese ΔFosB prokázala snížení exprese dynorfinu v NAc (20), myši ΔFosB pravděpodobně vykazují výrazné snížení čisté aktivace κ-opioidů ve VTA. Ačkoli signalizace dynorfinu obvykle vykazuje inhibiční účinek na dopaminové neurony (35), krysy, které vykazují zvýšenou samoaplikaci drog, vykazují snížené hladiny dynorfinu v NAc, což ukazuje na roli bazálně snížené signalizace dynorfinu při zvyšování citlivosti na odměnu (36, 37). Dysregulace systému dynorfin-κ-opioid byla spojena s akvizicí a přetrváním zneužívání drog, což podporuje kritickou rovnováhu opioidní signalizace v normalizaci dopaminových drah (38).
Na základě odměňující schopnosti energeticky husté HF diety jsme předpokládali, že dysregulace dopaminové a opioidní signalizace odměny u myší ΔFosB by tyto myši predisponovala k zesíleným reakcím na odměnu na takovou dietu, čímž by normalizovala systém odměny prostřednictvím aktivace okruhu hypothalamus-VTA-NAc . Během šestitýdenní expozice dietě nebyly pozorovány žádné rozdíly v příjmu potravy mezi ΔFosB a kontrolními myšmi, což naznačuje, že změny zjištěné v biochemických a molekulárních markerech signalizace odměny u myší ΔFosB nebyly způsobeny rozdíly v konzumovaných kaloriích. Jak se očekávalo, bazální rozdíly zjištěné v hladinách pCREB, celkového CREB, BDNF, DARPP-32 a κ-opioidních receptorů mezi ΔFosB a kontrolními myšmi byly utlumené, pravděpodobně v důsledku zvýšené produkce dopaminu u myší ΔFosB na HF (29, 39-41).
Zkoumání tyrosinhydroxylázy a dopaminového transportéru ve VTA odhalilo překvapivě protichůdné reakce myší ΔFosB a kontrolních myší po HF . Kontrolní myši vykazovaly sníženou expresi tyrosinhydroxylázy a dopaminového transportéru, zatímco myši ΔFosB vykazovaly zvýšenou expresi obou těchto genů souvisejících s dopaminem. Je zajímavé, že exprese tyrosinhydroxylázy je ve VTA změněna chronickým podáváním kokainu nebo metamfetaminu (42-44), což naznačuje, že myši ΔFosB mohou považovat přirozenou odměnu za HF za výraznější než kontrolní myši.
Za účelem zkoumání, jak potenciální hypotalamický vstup do VTA může být přenos signálů, které odrážejí energetickou bilanci, byla také zkoumána exprese receptoru leptinu a receptoru orexinu-1. Hladiny cirkulujícího leptinu jsou zvýšeny HF a leptin může zase působit na VTA pro změnu dopaminové signalizace (18, 45). Exprese VTA leptinového receptoru byla podobně snížena HF jak u AFosB, tak u kontrolních myší, v souladu s podobným přírůstkem hmotnosti a příjmem potravy, zatímco na HF. Vysoký tuk také zvýšil expresi orexinového receptoru-1 ve VTA jak AFosB, tak kontrolních myší. Orexin aktivuje dopaminové neurony ve VTA, podporuje plasticitu VTA a zvyšuje hladiny dopaminu v NAc (46-48). Bylo prokázáno, že dieta s vysokým obsahem tuku zvyšuje expresi orexinu u myší v souladu s našimi pozorováními (49, 50). Zvýšená exprese receptoru orexinu, stejně jako změny v signalizaci leptinu ve VTA by tak mohly podpořit dietní odměnu jak u AFOSB, tak u kontrolních myší, což by podpořilo disociaci mezi cestami, které přenášejí signály energetické bilance a ty, které jsou přímo vázány na odměnu.
Pro zkoumání účinků odnětí odměny na stres byly myši vyšetřeny v testu otevřeného pole 24 hodin po odstranění HF. Myši ΔFosB byly citlivější na akutní účinky odnětí preferované stravy a vykazovaly zvýšenou aktivitu vzrušení a produkci fekálních bolusů v nové otevřené aréně ve srovnání se všemi ostatními kontrolními skupinami a skupinami s danou stravou. Myši ΔFosB také v tomto testu vykazovaly zajímavý behaviorální vzorec naznačující citlivost na odměnu a stres, přičemž HF strava zpočátku snížila produkci fekálních bolusů v porovnání s krmivem a odnětí opět zvýšilo tuto reakci související s úzkostí. Toto pozorované zvýšení aktivity v otevřeném poli nekorelovalo se změnami v expresi orexinu, což naznačuje vztah ke stresem vyvolanému vzrušení, který není pouze důsledkem změn v signalizaci zprostředkované orexinem. Celkově tato data podporují naši hypotézu, že myši ΔFosB by byly citlivější na akutní účinky odnětí preferované stravy kvůli jejich zvýšené citlivosti na odměnu.
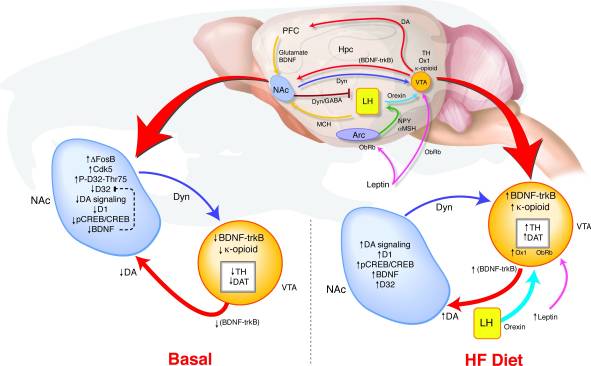
Jak vede dlouhodobá nadměrná exprese ΔFosB v NAc k takovým změnám v chování a signalizaci odměny ? Navrhli jsme model souběžné detekce VTA, kde změněná zpětná vazba z NAc a hypotalamu předává signály týkající se stavu odměny k určení regulace dopaminového systému, což může podporovat souvislost mezi dysregulací dráhy odměny a predispozicí k obezitě (obr. 8). Během expozice HF se do VTA sbíhá více vstupů odrážejících jak energetickou bilanci, tak stav odměny. Zvýšení signalizace leptinu a orexinu, stejně jako změněná zpětná vazba z NAc do laterálního hypotalamu, může ovlivnit, jak tyto orexigenní signály reagují na HF u myší ΔFosB (17, 18, 45, 47, 51-53). Zvýšení BDNF vyvolané stravou s vysokým obsahem tuku může poskytovat zpětnou vazbu odměny VTA, což dále podporuje změny v genové expresi související s dopaminem.
Obrázek 8
Dieta s vysokým obsahem tuku (HF) normalizuje dysregulovanou signalizaci odměny u myší AFosB
Tyto výsledky vymezují molekulární markery citlivosti na odměnu a ukazují, že dlouhodobá dysregulace dopaminového systému může predisponovat jedince k závislosti a obezitě. Dále tato data představují důležitý krok směrem k určení potenciálních nových terapeutických cílů v léčbě a prevenci obezity a dalších poruch, které se mohou soustředit na systém odměn. V budoucnu bude důležité prozkoumat, jak tento systém reaguje na odstranění HF stravy, a také zkoumat rozdíly mezi pohlavími v citlivosti na odměnu a expozici s vysokým obsahem tuku.
Doplňkový materiál
Supp. Metody
Klikněte zde pro zobrazení. (61K, doc)
Poděkování
Autoři chtějí poděkovat Cathy Steffenové za pomoc při chovu a transferu zvířat. Tato práce byla podpořena grantem Centra diabetické diagnózy University of Pennsylvania (DK019525) a grantů Národního institutu duševního zdraví (R01 MH51399 a P50 MH66172) a Národního institutu pro zneužívání drog (R01 DA07359).
Poznámky pod čarou
Finanční zveřejnění: Všichni autoři prohlašují, že nemají žádné biomedicínské finanční zájmy ani možné střety zájmů.
Reference
1. Wadden TA, Berkowitz RI, Womble LG, Sarwer DB, Phelan S, Cato RK, Hesson LA, Osei SY, Kaplan R, Stunkard AJ. Náhodná studie modifikace životního stylu a farmakoterapie obezity. N Engl J Med. 2005; 353 (20): 2111 – 20. [PubMed]
2. Blendy JA, Strasser A, Walters CL, Perkins KA, Patterson F, Berkowitz R, Lerman C. Snížená odměna za nikotin při obezitě: křížové srovnání u lidí a myší. Psychofarmakologie (Berl) 2005
3. Franken IH, Muris P. Individuální rozdíly v citlivosti na odměny se týkají touhy po potravinách a relativní tělesné hmotnosti u zdravých žen. Chuť. 2005; 45 (2): 198 – 201. [PubMed]
4. Kelley AE, Berridge KC. Neurovědy přirozených odměn: význam pro návykové látky. J Neurosci. 2002; 22 (9): 3306 – 11. [PubMed]
5. Cagniard B, Balsam PD, Brunner D, Zhuang X. Myši s chronicky zvýšeným dopaminem vykazují zvýšenou motivaci, ale ne učení, pro potravinovou odměnu. Neuropsychofarmakologie. 2006; 31 (7): 1362 – 70. [PubMed]
6. Liang NC, Hajnal A, Norgren R. Sham krmení kukuřičného oleje zvyšuje atopens dopamin u potkanů. Am. J. Physiol Regul Integr Comp. Physiol. 2006; 291 (5): R1236 – 9. [PubMed]
7. Mendoza J, Angeles-Castellanos M, Escobar C. Strhování chutným jídlem vyvolává potravinovou předvídatelnou aktivitu a expresi c-Fos v oblastech mozku spojených s odměnou. Neurověda. 2005; 133 (1): 293 – 303. [PubMed]
8. Schroeder BE, Binzak JM, Kelley AE. Běžný profil prefrontální kortikální aktivace po vystavení kontextovým pokynům spojeným s nikotinem nebo čokoládou. Neurověda. 2001; 105 (3): 535 – 45. [PubMed]
9. Nestler EJ, Barrot M, Self DW. DeltaFosB: trvalý molekulární přepínač pro závislost. Proc Natl Acad Sci US A. 2001, 98 (20): 11042 – 6. [PMC volný článek] [PubMed]
10. Teegarden SL, Bale TL. Snížení preferencí ve stravě má za následek zvýšenou emocionalitu a riziko relapsu potravy. Biol Psychiatrie. 2007; 61 (9): 1021 – 9. [PubMed]
11. Olausson P, Jentsch JD, Tronson N, Nestler EJ, Taylor JR. dFosB v Nucleus Accumbens reguluje instrumentální chování a motivaci posilující potraviny. Journal of Neuroscience. 2006; 26 (36): 9196 – 9204. [PubMed]
12. Chen J, Kelz MB, Zeng G, Sakai N, Steffen C, Shockett PE, Picciotto MR, Duman RS, Nestler EJ. Transgenní zvířata s indukovatelnou, cílenou genovou expresí v mozku. Mol Pharmacol. 1998; 54 (3): 495 – 503. [PubMed]
13. Kelz MB, Chen J, Carlezon WA, Jr, Whisler K, Gilden L, Beckmann AM, Steffen C, Zhang YJ, Marotti L, Self DW, Tkatch T, Baranauskas G, Surmeier DJ, Neve RL, Duman RS, Picciotto MR, Nestler EJ. Exprese transkripčního faktoru deltaFosB v mozku řídí citlivost na kokain. Příroda. 1999; 401 (6750): 272 – 6. [PubMed]
14. Bale TL, Dorsa DM. Rozdíly mezi pohlavími a účinky estrogenu na expresi oxytocinového receptoru ribonukleové kyseliny ve ventromediálním hypotalamu. Endokrinologie. 1995; 136 (1): 27 – 32. [PubMed]
15. Avena NM, Long KA, Hoebel BG. Potkani závislí na cukru vykazují zvýšenou reakci na cukr po abstinenci: důkaz deprivace cukru. Physiol Behav. 2005; 84 (3): 359 – 62. [PubMed]
16. Will MJ, Franzblau EB, Kelley AE. Nucleus accumbens mu-opioidy regulují příjem diety s vysokým obsahem tuku prostřednictvím aktivace distribuované sítě mozku. J Neurosci. 2003; 23 (7): 2882 – 8. [PubMed]
17. Zheng H, Patterson LM, Berthoud HR. Signalizace orexinů ve ventrální tegmentální oblasti je nutná pro apetit s vysokým obsahem tuku vyvolaný opioidní stimulací nucleus accumbens. J Neurosci. 2007; 27 (41): 11075 – 82. [PubMed]
18. Hommel JD, Trinko R, Sears RM, Georgescu D, Liu ZW, Gao XB, Thurmon JJ, Marinelli M, DiLeone RJ. Signalizace receptoru leptinu v dopaminových neuronech středního mozku reguluje krmení. Neuron. 2006; 51 (6): 801 – 10. [PubMed]
19. Colby CR, Whisler K, Steffen C, Nestler EJ, Self DW. Nadměrná exprese DeltaFosB specifická pro Striatální buněčný typ zvyšuje motivaci pro kokain. J Neurosci. 2003; 23 (6): 2488 – 93. [PubMed]
20. Zachariou V, Bolanos CA, Selley DE, Theobald D, Cassidy MP, Kelz MB, Shaw-Lutchman T, Berton O, Sim-Selley LJ, Dileone RJ, Kumar A, Nestler EJ. Zásadní role DeltaFosB v nucleus accumbens při působení morfinu. Nat Neurosci. 2006; 9 (2): 205 – 11. [PubMed]
21. Lee KW, Kim Y, Kim AM, Helmin K, Nairn AC, Greengard P. Kokainem indukovaná tvorba dendritické páteře u D1 a D2 dopaminového receptoru obsahujícího střední spiny neurony v nucleus accumbens. Proc Natl Acad Sci US A. 2006, 103 (9): 3399 – 404. [PMC volný článek] [PubMed]
22. Blendy JA, Maldonado R. Genetická analýza drogové závislosti: úloha vazebného proteinu cAMP odezvového prvku. J Mol Med. 1998; 76 (2): 104 – 10. [PubMed]
23. Nestler EJ. Molekulární mechanismy drogové závislosti. Neurofarmakologie. 2004; 47 1: 24 – 32. [PubMed]
24. Tanis KQ, Duman RS, Newton SS. Vazba a aktivita CREB v mozku: regionální specifičnost a indukce elektrokonvulzivním záchvatem. Biol Psychiatrie. 2007
25. Kumar A, Choi KH, Renthal W, Tsankova NM, Theobald DE, Truong HT, Russo SJ, Laplant Q, Sasaki TS, Whistler KN, Neve RL, Self DW, Nestler EJ. Remodelace chromatinu je klíčovým mechanismem, který je základem plasticity vyvolané kokainem ve striatu. Neuron. 2005; 48 (2): 303 – 14. [PubMed]
26. Graham DL, Edwards S, Bachtell RK, Dileone RJ, Rios M, Self DW. Dynamická aktivita BDNF v nucleus accumbens s užíváním kokainu zvyšuje vlastní podávání a relaps. Nat Neurosci. 2007; 10 (8): 1029 – 37. [PubMed]
27. Svenningsson P, Nairn AC, Greengard P. DARPP-32 zprostředkovává akce více drog zneužívání. Aaps J. 2005, 7 (2): E353 – 60. [PMC volný článek] [PubMed]
28. Palmer AA, Verbitsky M, Suresh R, Kamens HM, Reed CL, Li N, Burkhart-Kasch S, McKinnon CS, Belknap JK, Gilliam TC, Phillips TJ. Rozdíly genové exprese u myší divergentně vybraných pro metamfetaminovou citlivost. Mamm Genome. 2005; 16 (5): 291 – 305. [PubMed]
29. Bogush A, Pedrini S, Pelta-Heller J, Chan T, Yang Q, Mao Z, Sluzas E, Gieringer T, Ehrlich ME. AKT a CDK5 / p35 zprostředkovávají indukci DARPP-32 vyvolanou neurotrofickým faktorem v mozku in vitro u středně velkých spinálních neuronů. J. Biol. Chem. 2007; 282 (10): 7352 – 9. [PubMed]
30. Benavides DR, Bibb JA. Role Cdk5 v užívání drog a plasticitě. Ann NY Acad Sci. 2004; 1025: 335 – 44. [PubMed]
31. Bibb JA, Chen J, Taylor JR, Svenningsson P, Nishi A, Snyder GL, Yan Z, Sagawa ZK, Ouimet CC, Nairn AC, Nestler EJ, Greengard P. Účinky chronické expozice kokainu jsou regulovány neuronálním proteinem Cdk5. Příroda. 2001; 410 (6826): 376 – 80. [PubMed]
32. Blochl A, Sirrenberg C. Neurotrofiny stimulují uvolňování dopaminu z krysích mesencefalických neuronů prostřednictvím receptorů Trk a p75Lntr. J. Biol. Chem. 1996; 271 (35): 21100 – 7. [PubMed]
33. Berton O, McClung CA, Dileone RJ, Krishnan V, Renthal W, Russo SJ, Graham D, Tsankova NM, Bolanos CA, Rios M, Monteggia LM, Self DW, Nestler EJ. Základní úloha BDNF v mezolimbické dopaminové dráze v sociálním porážkovém stresu. Věda. 2006; 311 (5762): 864 – 8. [PubMed]
34. Nestler EJ, Carlezon WA., Jr Mezolimbický dopaminový odměňovací okruh v depresi. Biol Psychiatrie. 2006; 59 (12): 1151 – 9. [PubMed]
35. Ford CP, Beckstead MJ, Williams JT. Kapa opioidní inhibice postsynaptických proudů somatodendritických inhibitorů dopaminu. J. Neurophysiol. 2007; 97 (1): 883 – 91. [PubMed]
36. Nylander I, Vlaskovska M, Terenius L. Systémy dynorfinu mozku a enkefalinu u krys Fischer a Lewis: účinky tolerance morfinu a abstinence. Brain Res. 1995; 683 (1): 25 – 35. [PubMed]
37. Nylander I, Hyytia P, Forsander O, Terenius L. Rozdíly mezi alkoholem preferujícími (AA) a alkoholem vylučujícími (ANA) krysy v systémech prodynorphinu a proenkephalinu. Alcohol Clin Exp Res. 1994; 18 (5): 1272 – 9. [PubMed]
38. Kreek MJ. Kokain, dopamin a endogenní opioidní systém. J Addict Dis. 1996; 15 (4): 73 – 96. [PubMed]
39. Carlezon WA, Jr, Duman RS, Nestler EJ. Mnoho tváří CREB. Trendy Neurosci. 2005; 28 (8): 436 – 45. [PubMed]
40. Dudman JT, Eaton ME, Rajadhyaksha A, Macias W, Taher M, Barczak A, Kameyama K, Huganir R, Konradi C. Dopaminové receptory D1 zprostředkovávají fosforylaci CREB fosforylací NMDA receptoru na Ser897-NR1. J Neurochem. 2003; 87 (4): 922 – 34. [PubMed]
41. Vlastní DW. Regulace užívání léků a hledání chování neuroadaptací v mesolimbickém dopaminovém systému. Neurofarmakologie. 2004; 47 1: 242 – 55. [PubMed]
42. Beitner-Johnson D, Nestler EJ. Morfin a kokain mají společné chronické účinky na tyrosinhydroxylázu v oblastech dopaminergního odměňování mozku. J Neurochem. 1991; 57 (1): 344 – 7. [PubMed]
43. Lu L, Grimm JW, Shaham Y, Hope BT. Molekulární neuroadaptace v akumulaci a ventrální tegmentální oblasti během prvních 90 dnů nucené abstinence od kokainového podání u potkanů. J Neurochem. 2003; 85 (6): 1604 – 13. [PubMed]
44. Shepard JD, Chuang DT, Shaham Y, Morales M. Vliv samosprávy metamfetaminu na hladiny tyrosinhydroxylázy a dopaminu v mesolimbických a nigrostriatálních dopaminových drahách potkanů. Psychofarmakologie (Berl) 2006, 185 (4): 505 – 13.
45. Fulton S, Pissios P, Manchon RP, Stiles L, Frank L, Pothos EN, Maratos-Flier E, Flier JS. Leptinová regulace mezoaccumbens dopaminové dráhy. Neuron. 2006; 51 (6): 811 – 22. [PubMed]
46. Narita M, Nagumo Y, Miyatake M, Ikegami D, Kurahashi K, Suzuki T. Implikace protein kinázy C v orexinem indukovaném zvýšení extracelulárních hladin dopaminu a jeho odměňování. Eur J Neurosci. 2007; 25 (5): 1537 – 45. [PubMed]
47. Narita M., Nagumo Y, Hashimoto S., Khotib J, Miyatake M., Sakurai T, Yanagisawa M., Nakamachi T, Shioda S, Suzuki T. Přímé zapojení orexinergních systémů do aktivace mezolimbické dopaminové cesty a souvisejících chování vyvolaných morfinem. J Neurosci. 2006; 26 (2): 398 – 405. [PubMed]
48. Borgland SL, Taha SA, Sarti F, Fields HL, Bonci A. Orexin A ve VTA je kritický pro indukci synaptické plasticity a behaviorální senzibilizace na kokain. Neuron. 2006; 49 (4): 589 – 601. [PubMed]
49. Park ES, Yi SJ, Kim JS, Lee HS, Lee IS, Seong JK, Jin HK, Yoon YS. Změny v expresi orexinu-A a neuropeptidu Y v hypotalamu potkanů krmených nalačno a s vysokým obsahem tuku. J Vet Sci. 2004; 5 (4): 295 – 302. [PubMed]
50. Wortley KE, Chang GQ, Davydova Z, Leibowitz SF. Peptidy, které regulují příjem potravy: exprese genů orexinu je zvýšena během stavů hypertriglyceridemie. Am. J. Physiol Regul Integr Comp. Physiol. 2003; 284 (6): R1454 – 65. [PubMed]
51. Zheng H, Corkern M, Stoyanova I, Patterson LM, Tian R, Berthoud HR. Peptidy, které regulují příjem potravy: manipulace s jídlem indukující akumulace aktivuje hypotalamické orexinové neurony a inhibuje POMC neurony. Am. J. Physiol Regul Integr Comp. Physiol. 2003; 284 (6): R1436 – 44. [PubMed]
52. Baldo BA, Gual-Bonilla L, Sijapati K, Daniel RA, Landry CF, Kelley AE. Aktivace subpopulace hypotalamických neuronů obsahujících orexin / hypokretin pomocí inhibice jádra accumbens, zprostředkované receptorem GABAA, ale ne vystavením novému prostředí. Eur J Neurosci. 2004; 19 (2): 376 – 86. [PubMed]
53. Harris GC, Wimmer M, Aston-Jones G. Úloha pro laterální hypotalamické orexinové neurony v hledání odměny. Příroda. 2005; 437 (7058): 556 – 9. [PubMed]