COMENTARIOS: Revisión realizada por la directora del Instituto Nacional sobre el Abuso de Drogas, Nora Volkow, y su equipo. Esta revisión enumera las tres principales disfunciones neurobiológicas implicadas en todas las adicciones. En resumen, son: a) Desensibilización : una respuesta de placer atenuada debido a una disminución de la señalización de dopamina; b) Sensibilización : una respuesta de dopamina aumentada ante estímulos, desencadenantes o estrés relacionados con la adicción; y c) Hipofrontalidad : debilitamiento de los circuitos de autocontrol debido a una disminución del volumen y la función de la corteza frontal. Estos mismos cambios cerebrales fueron descritos por la Sociedad Americana de Medicina de la Adicción (ASAM) en su nueva definición de adicción, publicada en agosto de 2011.
Volkow ND, Wang GJ, Fowler JS, Tomasi D, Telang F, Baler R. Bioessays. 2010 Sep; 32 (9): 748-55.
Instituto Nacional sobre el Abuso de Drogas, NIH, Bethesda, MD 20892, EE. UU.
Resumen
Sobre la base de los hallazgos de imágenes cerebrales, presentamos un modelo según el cual la adicción surge como un desequilibrio en el procesamiento de la información y la integración entre varios circuitos y funciones cerebrales.
Las disfunciones reflejan:
(a) sensibilidad reducida de los circuitos de recompensa,
(b) mayor sensibilidad de los circuitos de memoria a las expectativas condicionadas a las drogas y señales de drogas, reactividad al estrés y estado de ánimo negativo,
(c) y un circuito de control debilitado.
Aunque la experimentación inicial con una droga de abuso es en gran medida un comportamiento voluntario, el uso continuado de drogas puede eventualmente afectar los circuitos neuronales en el cerebro involucrados en el libre albedrío, convirtiendo el uso de drogas en un comportamiento compulsivo automático. La capacidad de las drogas adictivas para cooptar señales de neurotransmisores entre neuronas (incluyendo dopamina, glutamato y GABA) modifica la función de diferentes circuitos neuronales, que comienzan a fallar en diferentes etapas de una trayectoria de adicción. Al exponerse a la droga, señales de drogas o estrés, esto resulta en una hiperactivación sin restricciones del circuito de motivación / manejo que resulta en el consumo compulsivo de drogas que caracteriza a la adicción.
Introducción
Los últimos años de investigación en neurociencia de 25 han producido evidencia de que la adicción es una enfermedad del cerebro, lo que proporciona un poderoso argumento para defender los mismos estándares de atención médica para el individuo adicto que los que son comunes a otras enfermedades con un gran impacto público, como diabetes. De hecho, la investigación sobre la adicción ha comenzado a descubrir la secuencia de eventos y las secuelas de larga duración que pueden resultar del abuso persistente de una sustancia adictiva. Estos estudios han demostrado cómo el uso repetido de drogas puede dirigirse a moléculas clave y circuitos cerebrales, y finalmente interrumpir los procesos de orden superior que subyacen a las emociones, la cognición y el comportamiento. Hemos aprendido que la adicción se caracteriza por un ciclo de disfunción en expansión en el cerebro. El deterioro generalmente comienza en las áreas evolutivamente más primitivas del cerebro que procesan la recompensa, y luego pasa a otras áreas responsables de funciones cognitivas más complejas. Así, además de la recompensa, los individuos adictos pueden experimentar graves interrupciones en el aprendizaje (memoria, condicionamiento, habituación), función ejecutiva (inhibición de impulsos, toma de decisiones, gratificación retardada), conciencia cognitiva (interocepción) e incluso emocional (reactividad de humor y estrés) funciones
A partir de los resultados de los estudios de imágenes cerebrales que utilizaron tomografía por emisión de positrones (TEP), presentamos los circuitos cerebrales clave que se ven afectados por el abuso crónico de drogas y luego presentamos un modelo coherente, según el cual la adicción surge como el resultado neto de Procesamiento de información desequilibrado en y entre estos circuitos. Una comprensión profunda de estos procesos cerebrales de adaptación gradual (neuroplásticos) y de los factores de vulnerabilidad biológica y ambiental que influyen en su probabilidad, es fundamental para el desarrollo de métodos de prevención y tratamiento más efectivos para combatir la adicción.
Altas, pero breves, ráfagas de dopamina son necesarias para la adicción
La adicción es, ante todo, una enfermedad del sistema de recompensa del cerebro. Este sistema utiliza el neurotransmisor dopamina (DA) como su principal medio para transmitir información. La DA cerebral desempeña un papel fundamental en el procesamiento de la información sobre la relevancia [ 1 , 2 ], que es esencial para su capacidad de regular o influir en la recompensa [ 3 , 4 ], la expectativa de recompensa [ 5 ], la motivación, las emociones y las sensaciones de placer. La liberación transitoria de DA en el estriado ventral del cerebro es un evento necesario, aunque no suficiente, en los complejos procesos que generan la sensación de recompensa: el aumento de DA parece estar positivamente relacionado con la intensidad del subidón que experimentan los sujetos. Las respuestas condicionadas solo se desencadenan cuando la DA se libera repetidamente en forma de estos picos agudos y transitorios, en respuesta a las drogas o a las señales asociadas a ellas.
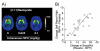
Curiosamente, directa o indirectamente, todas las drogas adictivas funcionan desencadenando aumentos exagerados pero transitorios de DA extracelular en una región clave del sistema de recompensa (límbico) [ 6 , 7 ], específicamente, en el núcleo accumbens (Nac) ubicado en el estriado ventral. Estos aumentos de DA se asemejan, y en algunos casos superan ampliamente, los aumentos fisiológicos desencadenados por estímulos naturalmente placenteros (generalmente denominados reforzadores naturales o recompensas). Como era de esperar, los estudios de neuroimagen humana mediante tomografía por emisión de positrones (PET) han demostrado claramente que los aumentos de DA inducidos por diferentes clases de drogas ( p. ej ., estimulantes ( Fig. 1A ), [ 8 , 9 ], nicotina [ 10 ] y alcohol [ 11 ]) dentro del estriado ventral, están vinculados a la experiencia subjetiva de euforia (o subidón) durante la intoxicación [ 12 , 13 , 14 ]. Dado que los estudios PET se pueden realizar en sujetos humanos despiertos, también es posible trazar la relación entre los informes subjetivos de los efectos de las drogas y los cambios relativos en los niveles de DA. La mayoría de los estudios han informado que aquellos que muestran los mayores aumentos de DA después de la exposición a drogas [anfetamina, nicotina, alcohol, metilfenidato (MPH)] también informan la euforia o el subidón más intenso ( Fig. 1B ).
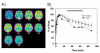
Estudios en animales y humanos han demostrado que la velocidad con la que un fármaco entra, actúa y sale del cerebro ( es decir, su perfil farmacocinético) desempeña un papel fundamental en la determinación de sus efectos reforzadores. De hecho, todas las drogas de abuso cuya farmacocinética cerebral se ha medido con PET (cocaína, MPH, metanfetamina y nicotina) exhiben el mismo perfil cuando la administración es intravenosa, es decir , los niveles máximos en el cerebro humano se alcanzan en 10 minutos ( Fig. 2A ) y esta rápida absorción se asocia con el "subidón" ( Fig. 2B ). Basándonos en esta asociación, se deduce que asegurar que una droga adictiva entre en el cerebro lo más lentamente posible debería ser una forma eficaz de minimizar su potencial reforzador y, por lo tanto, su riesgo de abuso. Diseñamos un experimento para probar precisamente esta hipótesis con el fármaco estimulante MPH, que, al igual que la cocaína, aumenta la DA al ralentizar su transporte de vuelta a la neurona presináptica ( es decir, bloqueando los transportadores de DA), amplificando así la señal de DA. De hecho, encontramos que, si bien la administración intravenosa de MPH suele ser euforizante, la MPH administrada por vía oral, que también aumenta la DA en el estriado [ 15 ], pero con una farmacocinética de 6 a 12 veces más lenta, no se percibe típicamente como reforzante [ 16 , 17 ]. Por lo tanto, el hecho de que la MPH oral —o la anfetamina [ 18 ]— no induzca un subidón es probablemente el reflejo de su lenta absorción en el cerebro [ 19 ]. Por consiguiente, es razonable proponer la existencia de una estrecha correlación entre la velocidad a la que una droga de abuso entra en el cerebro, que determina la velocidad a la que aumenta la DA en el estriado ventral, y sus efectos reforzantes [ 20 , 21 , 22 ]. En otras palabras, para que una droga ejerza efectos reforzantes tiene que elevar la DA abruptamente. ¿Por qué debería ser así?
Según la magnitud y la duración de la activación neuronal, la señalización de DA puede adoptar dos formas básicas: fásica o tónica. La señalización fásica se caracteriza por una alta amplitud y una activación corta en ráfagas, mientras que la señalización tónica suele tener una baja amplitud y una duración más prolongada o sostenida. Esta distinción es importante porque se ha demostrado que la señalización fásica de DA es necesaria para que las drogas de abuso induzcan "respuestas condicionadas", una de las neuroadaptaciones iniciales que siguen a la exposición a estímulos reforzantes (incluida una droga). Uno de los aspectos distintivos que vincula la señalización fásica con el condicionamiento es la participación de los receptores D2R y NMDA ( glutamato) [ 23 ] . Por otro lado, la señalización tónica de DA desempeña un papel en la modulación de la memoria de trabajo y otros procesos ejecutivos. Algunas de las características que distinguen este modo de señalización del tipo fásico son que opera principalmente a través de receptores de DA de menor afinidad (receptores DA D1). Sin embargo, y a pesar de los diferentes mecanismos involucrados, la exposición prolongada a fármacos (y los cambios en la señalización tónica de DA a través de estos receptores) también se han implicado en los cambios neuroplásticos que finalmente resultan en el condicionamiento [ 25 ] a través de la modificación de los receptores de glutamato NMDA y alfa-amino-3-hidroxi-5-metil-4-isoxazona-propionato (AMPA) [ 24 ].
La evidencia indica que los aumentos abruptos de DA inducidos por drogas imitan la activación fásica de las células DA. Esto ayuda a explicar por qué el uso crónico de una sustancia adictiva puede generar respuestas condicionadas tan poderosas a la droga en sí, a su expectativa y a la miríada de señales (personas, cosas y lugares) asociadas con su uso. Sin embargo, si bien los efectos de refuerzo agudos de las drogas de abuso que dependen de tales aumentos rápidos de DA son probablemente "necesarios" para el desarrollo de la adicción, claramente no son "suficientes". La exposición repetida a las drogas causa cambios en la función cerebral DA que tardan en desarrollarse porque resultan de neuroadaptaciones secundarias en otros sistemas de neurotransmisores ( por ejemplo , glutamato [ 26 ] y quizás también ácido γ-aminobutírico (GABA)) que, eventualmente, afectan circuitos cerebrales adicionales modulados por DA. Estos circuitos son el foco de las siguientes secciones.
El abuso crónico de drogas regula a la baja los receptores de dopamina y la producción de dopamina: el "alto" está atenuado
El hecho de que el consumo de drogas deba volverse crónico antes de que la adicción se arraigue es una clara indicación de que la enfermedad se basa, en individuos vulnerables, en perturbaciones repetidas del sistema de recompensa. Estas perturbaciones pueden eventualmente conducir a neuroadaptaciones en muchos otros circuitos (motivación/impulso, control inhibitorio/función ejecutiva y memoria/condicionamiento) que también están modulados por DA [ 27 ]. Entre las neuroadaptaciones que se han reportado consistentemente en sujetos adictos están las reducciones significativas en los niveles de los receptores D2R (de alta afinidad) y en la cantidad de DA liberada por las células DA [ 28 ] ( Fig. 3 ). Es importante destacar que estos déficits están asociados con una menor actividad metabólica regional en áreas de la corteza prefrontal (CPF) que son críticas para el correcto desempeño ejecutivo ( es decir , giro cingulado anterior (GC) y corteza orbitofrontal (COF)) ( Fig. 4A ). Esta observación nos llevó a postular que este puede ser uno de los mecanismos que conectan la alteración inducida por fármacos en la señalización de DA con la administración compulsiva de fármacos y la falta de control sobre la ingesta de fármacos que caracteriza la adicción [ 29 ]. Además, el estado hipodopaminérgico resultante explicaría la disminución de la sensibilidad de un individuo adicto a las recompensas naturales (p. ej. comida, sexo, etc.) y la perpetuación del consumo de fármacos como un medio para compensar temporalmente este déficit [ 30 ]. Un corolario importante de este conocimiento es que abordar estos déficits (al aumentar los niveles de D2R estriatal y aumentar la liberación de DA en el estriado y las regiones prefrontales) podría ofrecer una estrategia clínica para mejorar el impacto de la adicción [ 31 ]. ¿Hay alguna evidencia de que revertir el estado hipodopaminérgico pueda tener un impacto positivo en los comportamientos relacionados con el abuso de sustancias? La respuesta es sí. Nuestros estudios demuestran que, al inducir la sobreproducción de D2R en las profundidades del sistema de recompensa de ratas con experiencia en cocaína o alcohol, podemos reducir significativamente la autoadministración de cocaína [ 31 ] o alcohol [ 32 ], respectivamente. Además, en roedores, así como en personas que abusan de la metanfetamina [ 33 ], un nivel reducido de D2R en el cuerpo estriado también se asocia con la impulsividad, y en roedores predice patrones compulsivos de autoadministración de drogas (véase más adelante).
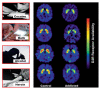
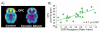
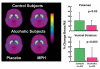
Los estudios de imagen también han demostrado que, en humanos, la adicción se asocia con una disminución en la liberación de DA en el estriado ventral y en otras regiones del estriado, y con respuestas placenteras atenuadas a la droga en usuarios activos y desintoxicados ( Fig. 5 ) [ 34 ]. Este fue un hallazgo inesperado, ya que se había hipotetizado que la adicción reflejaba una mayor sensibilidad a las respuestas gratificantes (y por lo tanto dopaminérgicas) a las drogas. En los drogadictos, las disminuciones en la liberación de DA podrían reflejar una neurofisiología alterada dentro del circuito de recompensa ( es decir , en las neuronas DA que liberan DA en el estriado) o, alternativamente, una regulación de retroalimentación alterada del circuito de recompensa por vías prefrontales (control ejecutivo) o amigdalinas (emocionales) (vías glutamatérgicas prefrontales-estriatales, amigdalinas-estriatales). Dado que una disfunción dopaminérgica pura en el cuerpo estriado, como la que se observa en el consumidor crónico de drogas, no explica los rasgos que caracterizan las conductas adictivas, como la impulsividad, los antojos y la recaída desencadenada por estímulos relacionados con las drogas, es muy probable que las regiones prefrontales (así como la amígdala) también estén implicadas, ya que su alteración permitiría o al menos influiría en estos rasgos conductuales.
Los niveles bajos de receptor de dopamina (DR2) impiden el control de la impulsividad por parte de la corteza prefrontal
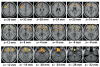
Se ha planteado la hipótesis de que el control deficiente sobre las conductas de consumo compulsivo de drogas que caracteriza la adicción puede deberse en parte a disfunciones específicas en las regiones frontales del cerebro [ 35 ]. Ahora existe una cantidad significativa de evidencia que apoya esta noción, comenzando con estudios en animales que exploran la conexión entre D2R y el control conductual. Los experimentos con ratas muestran claramente una correlación entre D2R bajo e impulsividad [ 36 ], y entre impulsividad y autoadministración de drogas [ 37 ]. Pero ¿cuál es la conexión? Como se mencionó anteriormente, en los drogadictos, D2R estriatal más bajo se correlaciona significativamente con un metabolismo de glucosa cerebral más bajo en regiones clave de la PFC, como la OFC (involucrada con la atribución de saliencia y cuya alteración resulta en conductas compulsivas) y en CG (involucrada con el control inhibitorio y la monitorización de errores y cuya alteración resulta en impulsividad) ( Fig. 4B ) [ 38 , 39 ]. Además, en un estudio que realizamos en individuos (media DE ± edad, 24 ± 3 años) con antecedentes familiares de alcoholismo, pero que no eran alcohólicos, también descubrimos una asociación significativa entre el D2R estriatal y el metabolismo en regiones frontales (CG, OFC y PFC dorsolateral) y también en la ínsula anterior (involucrada en la interocepción, la autoconciencia y el deseo de drogas) [ 40 ] ( Fig. 6 ). Curiosamente, estos individuos tenían un D2R estriatal más alto que los controles emparejados sin antecedentes familiares de alcoholismo, aunque no diferían en el metabolismo frontal. Además, en los controles, el D2R estriatal no se correlacionó con el metabolismo frontal. Esto nos llevó a especular que el D2R estriatal más alto de lo normal en sujetos con un alto riesgo genético de alcoholismo los protege contra el alcoholismo en parte al fortalecer la actividad en las regiones prefrontales. En conjunto, estos datos sugieren que los altos niveles de D2R en el cuerpo estriado podrían proteger contra el abuso de drogas y la adicción al mantener bajo control los rasgos de impulsividad, es decir , al regular los circuitos involucrados en la inhibición de las respuestas conductuales y en el control de las emociones.
De manera similar, planteamos la hipótesis de que las regiones prefrontales también están involucradas en la reducción de la liberación de DA estriatal (y refuerzo) observada en sujetos adictos, ya que regulan el disparo de las células DA en el mesencéfalo y la liberación de DA en el estriado. Para probar esta hipótesis, evaluamos la relación entre el metabolismo basal en la corteza prefrontal y los aumentos en DA estriatal inducidos por la administración intravenosa de MPH en controles y en alcohólicos desintoxicados. De acuerdo con la hipótesis, en los alcohólicos no detectamos la asociación normal entre el metabolismo prefrontal basal y la liberación de DA en el estriado, lo que sugiere que las marcadas disminuciones en la liberación de DA en el estriado observadas en los alcohólicos reflejan en parte una regulación inadecuada de la actividad cerebral por parte de las regiones cerebrales prefrontales [ 34 ].
Por lo tanto, hemos encontrado una asociación entre la actividad basal reducida en PFC y la D2R estriada reducida en sujetos adictos a las drogas, y entre la actividad PFC basal y la liberación de DA en controles que no está presente en individuos adictos. Estas asociaciones evidencian las fuertes conexiones entre las neuroadaptaciones en las vías de PFC y las disfunciones posteriores en la recompensa de DA y el sistema motivacional, probablemente debido a la influencia de PFC en la impulsividad y la compulsividad. Sin embargo, estos no tienen en cuenta fenómenos de comportamiento adicionales, como los efectos de las señales asociadas a las drogas en el desencadenamiento del deseo, lo que presumiblemente implicaría la memoria y los circuitos de aprendizaje.
Los recuerdos condicionados y los comportamientos estereotipados reemplazan el "alto" como conductor.
La sobreestimulación de las células DA en el estriado ventral eventualmente establece nuevas conexiones funcionales en el cerebro entre el acto de satisfacer el impulso y los eventos situacionales que lo rodean (p. ej., entorno, rutina de preparación de la droga, etc.), estableciendo nuevas y poderosas asociaciones aprendidas que pueden desencadenar el comportamiento. En última instancia, el mero recuerdo o anticipación de la droga puede desencadenar los comportamientos impulsivos que caracterizan a las personas adictas. Con el uso repetido de la droga, la activación de las células DA en el estriado comienza a cambiar la neuroquímica subyacente al aprendizaje asociativo. Esto facilita la consolidación de huellas de memoria desadaptativas conectadas con la droga, lo que ayuda a explicar la capacidad de todo tipo de estímulos asociados con la droga (en la expectativa aprendida de recibir la recompensa de la droga cuando se exponen a estos estímulos) [ 41 ] para desencadenar fácilmente la activación de las células DA. Y debido al papel de la DA en la motivación, estos aumentos de DA desencadenan el impulso motivacional necesario para asegurar la recompensa [ 42 ]. De hecho, cuando las ratas se exponen repetidamente a un estímulo neutro asociado con la droga (condicionado), esto puede provocar aumentos de DA y restablecer la autoadministración de la droga [ 43 ]. Estas respuestas condicionadas son clínicamente relevantes en los trastornos por consumo de sustancias, ya que son responsables de la alta probabilidad de recaída en una persona adicta, incluso después de largos periodos de desintoxicación. Ahora, las técnicas de neuroimagen nos permiten comprobar si la exposición de los humanos a señales asociadas con las drogas puede desencadenar el deseo de consumirlas, tal como se ha demostrado en animales de laboratorio.
Con el uso repetido de drogas, la activación de las células DA en el estriado comienza a cambiar la neuroquímica subyacente al aprendizaje asociativo. Esto facilita la consolidación de huellas de memoria desadaptativas conectadas a la droga, lo que ayuda a explicar la capacidad de todo tipo de estímulos asociados a las drogas (en la expectativa aprendida de recibir la recompensa de la droga al exponerse a estos estímulos) [ 41 ] para activar fácilmente la activación de las células DA. Y debido al papel de la DA en la motivación, estos aumentos de DA activan el impulso motivacional necesario para asegurar la recompensa [ 42 ]. De hecho, cuando las ratas son expuestas repetidamente a un estímulo neutro que se asocia con la droga (condicionado), puede provocar aumentos de DA y restablecer la autoadministración de la droga [ 43 ]. Estas respuestas condicionadas son clínicamente relevantes en los trastornos por consumo de sustancias porque son responsables de la alta probabilidad de que una persona adicta recaiga incluso después de períodos prolongados de desintoxicación. Ahora, las técnicas de neuroimagen nos permiten comprobar si la exposición de los humanos a señales asociadas a las drogas puede desencadenar el deseo de consumir drogas, tal como se ha demostrado en animales de laboratorio.
Esta cuestión se ha investigado en consumidores activos de cocaína. Mediante PET y [ 11C ]racloprida, dos estudios independientes demostraron que la exposición a un vídeo con estímulos relacionados con la cocaína (de sujetos fumando cocaína), pero no a un vídeo neutro (de escenas de la naturaleza), incrementó la DA estriatal en sujetos humanos adictos a la cocaína ( Fig. 7 ) y que estos incrementos de DA se asociaron con informes subjetivos de deseo compulsivo de la droga [ 44 , 45 ]. Cuanto mayores eran los incrementos de DA provocados por la exposición al vídeo con estímulos relacionados con la cocaína, más intenso era el deseo compulsivo de la droga. Además, la magnitud de los incrementos de DA también se correlacionó con las puntuaciones de gravedad de la adicción, lo que subraya la relevancia de las respuestas condicionadas en el síndrome clínico de la adicción.
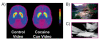
Es importante destacar, sin embargo, que a pesar de la supuesta fuerza de estas asociaciones desadaptativas, recientemente hemos reunido nuevas evidencias que sugieren que los consumidores de cocaína conservan cierta capacidad para inhibir intencionadamente el deseo compulsivo. Por lo tanto, las estrategias para fortalecer la regulación frontoestriatal pueden ofrecer beneficios terapéuticos potenciales [ 46 ].
Cómo aplicar todos los conceptos
Algunas de las características más perniciosas de la adicción a las drogas son el deseo abrumador de tomar drogas que pueden resurgir incluso después de años de abstinencia, y la capacidad gravemente comprometida de los individuos adictos para inhibir la búsqueda de drogas una vez que el deseo surge a pesar de las consecuencias negativas bien conocidas.
Hemos propuesto un modelo de adicción [ 47 ] que explica la naturaleza multidimensional de esta enfermedad al proponer una red de cuatro circuitos interrelacionados, cuya salida disfuncional combinada puede explicar muchas de las características conductuales estereotípicas de la adicción: (a) recompensa, incluyendo varios núcleos en los ganglios basales, especialmente el estriado ventral, cuyo Nac recibe entrada del área tegmental ventral y transmite la información al pálido ventral (VP); (b) motivación/impulso, ubicado en la OFC, corteza subcallosa, estriado dorsal y corteza motora; (c) memoria y aprendizaje, ubicados en la amígdala y el hipocampo; y (d) planificación y control, ubicados en la corteza prefrontal dorsolateral, CG anterior y corteza frontal inferior. Estos cuatro circuitos reciben inervaciones directas de neuronas DA pero también están conectados entre sí a través de proyecciones directas o indirectas (principalmente glutamatérgicas).
Los cuatro circuitos de este modelo trabajan juntos y su funcionamiento cambia con la experiencia. Cada uno está vinculado a un concepto importante, respectivamente: prominencia (recompensa), estado interno (motivación/impulso), asociaciones aprendidas (memoria, condicionamiento) y resolución de conflictos (control). Además, estos circuitos también interactúan con circuitos relacionados con el estado de ánimo (incluida la reactividad al estrés) [ 48 ] y con la interocepción (que da lugar a la conciencia del deseo de consumir drogas y del estado de ánimo) [ 49 ]. Hemos propuesto que el patrón de actividad en la red de cuatro circuitos aquí descrita influye en cómo un individuo normal toma decisiones entre alternativas competitivas. Estas decisiones están influenciadas sistemáticamente por los circuitos de recompensa, memoria/condicionamiento, motivación y control, y estos, a su vez, están modulados por circuitos que subyacen al estado de ánimo y la conciencia ( Fig. 8A ).
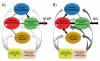
La respuesta a un estímulo se ve afectada por su prominencia momentánea, es decir, su recompensa esperada. A su vez, la expectativa de recompensa es procesada en parte por neuronas DA que se proyectan al estriado ventral y está influenciada por proyecciones glutamatérgicas de la OFC (que asigna un valor de prominencia en función del contexto) y la amígdala/hipocampo (que median las respuestas condicionadas y los recuerdos de memoria). El valor del estímulo se pondera (compara) con el de otros estímulos alternativos, pero también cambia en función de las necesidades internas del individuo, que están moduladas por el estado de ánimo (incluida la reactividad al estrés) y la conciencia interoceptiva. En particular, la exposición al estrés aumenta el valor de prominencia de las drogas, mientras que al mismo tiempo disminuye la regulación prefrontal de la amígdala [ 50 ]. Además, dado que la exposición crónica a las drogas está vinculada a una mayor sensibilización a las respuestas al estrés, esto explica por qué el estrés puede desencadenar una recaída en el consumo de drogas con tanta frecuencia en situaciones clínicas. Cuanto mayor sea el valor de prominencia del estímulo, moldeado en parte por experiencias previamente memorizadas, mayor será la activación del circuito motivacional y más fuerte el impulso para obtenerlo. La decisión cognitiva de actuar (o no) para obtener el estímulo es procesada en parte por la CPF y la CG, que sopesan el equilibrio entre los resultados positivos inmediatos y los negativos diferidos, y por la corteza frontal inferior (Área Broadmann 44), que trabaja para inhibir la respuesta prepotente a actuar [ 51 ].
Según este modelo, en el sujeto adicto ( Fig. 8B ), el valor de prominencia de la droga de abuso y sus señales asociadas se incrementa a expensas de otras recompensas (naturales), cuya prominencia se reduce notablemente. Esto explicaría la mayor motivación para buscar la droga. Sin embargo, la exposición aguda a la droga también restablece los umbrales de recompensa, lo que resulta en una menor sensibilidad del circuito de recompensa a los reforzadores [ 52 ], lo que también ayuda a explicar la disminución del valor de los reforzadores no farmacológicos en la persona adicta. Otra razón para la mayor prominencia de una droga es la falta de habituación de las respuestas DA a las drogas de abuso (tolerancia) en comparación con la habituación normal que existe para las recompensas naturales y que resulta en saciedad [ 53 ].
Además, la exposición a estímulos condicionados es suficiente para aumentar los umbrales de recompensa [ 54 ]; por lo tanto, predeciríamos que en una persona adicta, la exposición a un entorno con señales condicionadas exacerbaría aún más su sensibilidad reducida a las recompensas naturales. En ausencia de competencia por otros reforzadores, el aprendizaje condicionado eleva la adquisición de la droga al nivel de un impulso motivacional principal para el individuo. Planteamos la hipótesis de que las señales de la droga (o el estrés) dan como resultado aumentos rápidos de DA en el Nac en el estriado ventral y en el estriado dorsal que impulsan la motivación para tomar la droga y no pueden ser contrarrestados adecuadamente por una PFC disfuncional. Por lo tanto, tras el consumo de la droga y la intoxicación, el aumento de las señales de DA daría como resultado una sobreactivación correspondiente de los circuitos motivacionales/de impulso y de memoria, que desactivan la PFC (la inhibición prefrontal ocurre con una intensa activación de la amígdala) [ 50 ], bloqueando el poder de la PFC para controlar el circuito motivacional/de impulso. Sin este control inhibitorio, se establece un ciclo de retroalimentación positiva que conduce al consumo compulsivo de la droga. Dado que las interacciones entre los circuitos son bidireccionales, la activación de la red durante la intoxicación refuerza aún más la relevancia de la droga y el condicionamiento a las señales asociadas a ella.
Conclusiones
En resumen, proponemos un modelo que explica la adicción de la siguiente manera: Durante la adicción, el valor incrementado de las señales asociadas a la droga en el circuito de memoria impulsa la expectativa de recompensa y aumenta la motivación para consumirla, superando el control inhibitorio ejercido por una corteza prefrontal ya disfuncional. Si bien el aumento de dopamina inducido por la droga se atenúa notablemente en los sujetos adictos, los efectos farmacológicos de la droga se convierten en respuestas condicionadas en sí mismas, lo que impulsa aún más la motivación para consumirla y favorece un bucle de retroalimentación positiva ahora sin oposición, debido a la desconexión del circuito de control prefrontal. Al mismo tiempo, es probable que la adicción también recalibre los circuitos que instauran el estado de ánimo y la conciencia (representados por tonos más oscuros de gris) ( Fig. 8B ) de maneras que, de corroborarse experimentalmente, inclinarían aún más la balanza alejándose del control inhibitorio y acercándose al deseo compulsivo y al consumo compulsivo de drogas.
Admitimos fácilmente que este es un modelo simplificado: nos damos cuenta de que otras regiones del cerebro también deben participar en estos circuitos, que una región puede contribuir a varios circuitos y que es probable que otros circuitos también participen en la adicción. Además, aunque este modelo se centra en la DA, es evidente a partir de estudios preclínicos que las modificaciones en las proyecciones glutamatérgicas median en muchas de las adaptaciones observadas en la adicción y que discutimos aquí. También es evidente a partir de estudios preclínicos que otros neurotransmisores están involucrados en los efectos de refuerzo de las drogas, incluidos los cannabinoides y los opioides. Desafortunadamente, hasta hace poco, el acceso limitado a los radiotrazadores para la obtención de imágenes PET ha limitado la capacidad de investigar la participación de otros neurotransmisores en la recompensa de medicamentos y en la adicción.
Abreviaturas
- AMPA
- α-amino-3-hidroxil-5-metil-4-isoxazol-propionato
- CG
- giro cingulado
- CTX
- corteza
- D2R
- receptor de dopamina tipo 2 / 3
- DA
- dopamina
- FDG
- fluorodeoxiglucosa
- GABA
- Ácido γ-aminobutírico
- HPA
- eje hipotalámico hipotalámico
- MPH
- metilfenidato
- Nac
- núcleo accumbens
- NMDA
- n-Metil-d-ácido aspártico
- OFC
- corteza orbitofrontal
- PET
- Tomografía de emisión de positrones
- PFC
- la corteza prefrontal
- VP
- pálido ventral
Referencias
55. Fowler JS, Volkow ND, Logan J, et al. Rápida captación y unión de larga duración de la metanfetamina en el cerebro humano: comparación con la cocaína. Neuroimage. 2008; 43 :756–63. [ Artículo gratuito en PMC ] [ PubMed]