Comentarios: Esta revisión fue producida por la jefa de NIDA, Nora Volkow, y su equipo. Deja pocas dudas de que las adicciones químicas y las adicciones conductuales comparten mecanismos y circuitos neuronales similares o similares. Esto tiene mucho sentido, ya que las adicciones químicas secuestran los circuitos neuronales para la unión, el sexo y la alimentación. Dado que el sexo libera dos veces más dopamina que comer tu comida favorita, y un usuario de pornografía puede mantenerla elevada durante horas, es una locura proponer que la adicción a la pornografía no puede existir.
Curr Top Behav Neurosci. 2011 Oct 21.
Volkow ND, Wang GJ, Fowler JS, Tomasi D, Baler R.
Fuente
Instituto Nacional sobre el Abuso de Drogas, 6001 Executive Boulevard 6001, Sala 5274, Bethesda, MD, 20892, EE. UU., [email protected].
Resumen
Tanto la drogadicción como la obesidad pueden definirse como trastornos en los que el valor de relevancia de un tipo de recompensa (drogas y comida, respectivamente) se incrementa anormalmente en relación con otras, y a expensas de ellas. Este modelo es coherente con el hecho de que tanto las drogas como la comida tienen potentes efectos reforzadores —mediados en parte por aumentos de dopamina en el sistema límbico— que, en ciertas circunstancias o en individuos vulnerables, podrían sobrepasar los mecanismos de control homeostático del cerebro. Tales paralelismos han generado un gran interés en comprender las vulnerabilidades y trayectorias compartidas entre la adicción y la obesidad. Ahora, los descubrimientos en neuroimagen han comenzado a revelar características comunes entre estas dos afecciones y a delimitar algunos de los circuitos cerebrales superpuestos cuyas disfunciones podrían explicar los déficits conductuales estereotipados y relacionados en sujetos humanos. Estos resultados sugieren que tanto las personas obesas como las drogadictas sufren alteraciones en las vías dopaminérgicas que regulan los sistemas neuronales asociados no solo con la sensibilidad a la recompensa y la motivación de incentivo, sino también con el condicionamiento (memoria/aprendizaje), el control de impulsos (inhibición conductual), la reactividad al estrés y la conciencia interoceptiva. En este trabajo, integramos hallazgos derivados principalmente de la tomografía por emisión de positrones que arrojan luz sobre el papel de la dopamina en la drogadicción y la obesidad, y proponemos un modelo de trabajo actualizado para ayudar a identificar estrategias de tratamiento que puedan beneficiar a ambas afecciones.
1 Antecedentes
2. El papel de la dopamina en la recompensa aguda a las drogas y los alimentos.
3. Imágenes de la actividad dopaminérgica en respuesta a las drogas y a las señales condicionadas en la adicción.
4. El impacto de la disfunción en el control inhibitorio
5. Participación de los circuitos de motivación
6. Implicación de los circuitos interoceptivos
7. El circuito de la aversión
8. Recompensa patológica por drogas y alimentos: un modelo de trabajo actualizado
1 Fondo
La dopamina (DA) se considera clave para los efectos gratificantes de las recompensas naturales y farmacológicas. Sin embargo, su papel en la pérdida de control y las conductas compulsivas asociadas a la adicción y la obesidad es mucho menos claro. Los estudios PET han desempeñado un papel crucial en la caracterización del papel de los sistemas de DA cerebrales en la adicción (además de su papel en la recompensa de las drogas) y en la obesidad. De hecho, las drogas de abuso (incluido el alcohol) son consumidas por humanos o autoadministradas por animales de laboratorio porque son intrínsecamente gratificantes, un efecto mediado por sus propiedades potenciadoras de DA en el sistema mesolímbico (Wise 2009 ). Sin embargo, en el caso de la adicción, los estudios de neuroimagen han revelado que el trastorno afecta no solo al circuito de recompensa de DA, sino también a otras vías de DA implicadas en la modulación del condicionamiento/hábitos, la motivación y las funciones ejecutivas (control inhibitorio, atribución de relevancia y toma de decisiones), y que los déficits de DA también pueden participar en la mayor reactividad al estrés y la alteración de la conciencia interoceptiva asociadas a la adicción. Los estudios preclínicos y clínicos también han revelado otros neurotransmisores (y neuropéptidos) que desempeñan funciones importantes en la recompensa y la adicción a las drogas (p. ej., cannabinoides, opioides) y que están íntimamente involucrados en los cambios neuroplásticos que siguen al uso repetido de drogas (p. ej., glutamato, opioides, GABA, factor liberador de corticotropina). El sistema glutamatérgico es particularmente prominente en este sentido porque media las alteraciones tanto en la potenciación a largo plazo como en la depresión a largo plazo que se han observado en modelos animales de administración crónica de drogas (Thomas et al. 2008 ). Se pueden encontrar revisiones relacionadas con estos sistemas adicionales en otras fuentes (Kalivas 2009 ; Koob 1992 ).
Dado que las drogas activan los mismos sistemas de recompensa que subyacen a la recompensa alimentaria, no es del todo inesperado que, en general, los estudios de neuroimagen hayan respaldado la idea de que las alteraciones en los circuitos modulados por DA también estén implicadas en conductas alimentarias patológicas y compulsivas . Las señales alimentarias, al igual que las señales de drogas, aumentan la DA extracelular estriatal e impulsan la motivación para participar en las conductas necesarias para obtener y comer la comida, lo que proporciona evidencia de la participación de la DA no solo en la recompensa alimentaria sino también en las propiedades motivacionales no hedónicas de la comida (es decir, los requerimientos calóricos) y la disminución del control inhibitorio que se observa en la sobrealimentación compulsiva (Avena et al. 2008 ; Volkow et al. 2008a ).
Aquí, revisamos los hallazgos de estudios de neuroimagen que se centran específicamente en las superposiciones de los circuitos cerebrales que se ven alterados en la obesidad y en la drogadicción. Sin embargo, es importante recordar que la regulación de los comportamientos de ingesta de alimentos es mucho más compleja que la regulación de la ingesta de drogas. Esta última está mediada principalmente por los efectos gratificantes de las drogas, mientras que la primera está modulada no solo por sus efectos gratificantes (factores hedónicos), sino también por múltiples factores periféricos y centrales que detectan los requerimientos nutricionales del cuerpo necesarios para la supervivencia (factores homeostáticos). Curiosamente, existe evidencia creciente de que los factores homeostáticos (por ejemplo, insulina, leptina, grelina) modulan la ingesta de alimentos, en parte, aumentando o disminuyendo la sensibilidad de los circuitos de recompensa cerebrales a los estímulos alimentarios (Volkow et al. 2011a ).
2 El papel de la dopamina en la recompensa aguda a las drogas y los alimentos
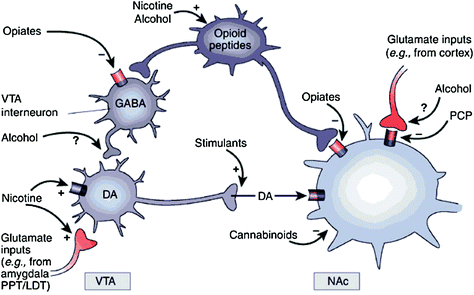
Ya sea de forma directa o indirecta, todas las drogas adictivas muestran la capacidad de aumentar la DA en el núcleo accumbens (NAc) a través de interacciones específicas con diferentes dianas moleculares (Nestler 2004 ) (Fig. 1 ). La vía DA mesolímbica [células DA en el área tegmental ventral (VTA) que se proyectan al NAc] parece ser crucial para la recompensa de las drogas (Wise 2009 ). Sin embargo, como se describe más adelante, otras vías DA [mesoestriatal (células DA en la sustancia negra que se proyectan al estriado dorsal) y mesocortical (células DA en la VTA que se proyectan a la corteza frontal)] también contribuyen a la recompensa y la adicción a las drogas (Wise 2009 ). En general, parece que los efectos gratificantes y condicionantes de las drogas están impulsados predominantemente por la activación fásica de las células DA, lo que conduce a grandes y transitorios aumentos de DA. En contraste, los cambios posteriores en la función ejecutiva que ocurren en la adicción están vinculados con cambios en la activación tónica de las células DA y resultan en niveles de DA más bajos pero más estables (Grace 2000 ; Wanat et al. 2009 ). Esto, a su vez, apunta a los receptores D1 (D1R), que son receptores DA de baja afinidad que estimulan la señalización del AMP cíclico, como involucrados tanto en la recompensa aguda de las drogas como en el condicionamiento, ya que estos están asociados con las altas concentraciones de DA necesarias para estimular los D1R. Por el contrario, los D2R, que inhiben la señalización del AMP cíclico, son estimulados tanto por la DA fásica como por la tónica. Cabe señalar que, debido a la falta de radiotrazadores específicos para la imagen PET de los receptores DA de los tipos D1, D3, D4 y D5, la mayoría de los estudios sobre los efectos de las drogas de abuso y la adicción en el cerebro humano se han centrado en los D2R.
Fig. 1 Las drogas de abuso actúan sobre los circuitos de recompensa y accesorios a través de diferentes mecanismos; sin embargo, todos conducen a efectos dopaminérgicos similares en el VTA y el NAc . Así, los estimulantes aumentan la DA del núcleo accumbens directamente, mientras que los opiáceos lo hacen al disminuir el tono inhibitorio de las interneuronas GABAérgicas sobre la señalización de DA tanto en el VTA como en el NAc. Si bien los mecanismos de otras drogas de abuso son menos claros, hay evidencia que sugiere que la nicotina puede activar la DA del VTA directamente a través del receptor nicotínico de acetilcolina (nAChR) en esas neuronas e indirectamente a través de la estimulación de sus receptores en las terminales nerviosas glutamatérgicas que inervan las células DA. El alcohol parece inhibir las terminales GABAérgicas en el VTA, lo que conduce a la desinhibición de las neuronas DA en el VTA. Los cannabinoides actúan, entre otros, a través de la activación de los receptores CB1 en las terminales nerviosas glutamatérgicas y GABAérgicas en el NAc, y en las propias neuronas del NAc. La fenciclidina (PCP) podría actuar inhibiendo los receptores de glutamato NMDA postsinápticos en el núcleo accumbens (NAc). Además, existen indicios que sugieren que la nicotina y el alcohol también podrían interactuar con las vías opioides y cannabinoides endógenas (datos no mostrados). PPT/LDT: tegmento pontino peduncular/tegmento dorsal lateral. Reimpreso con permiso de Nestler ( 2005 ).
En humanos, los estudios PET han demostrado que varios fármacos [estimulantes (Drevets et al. 2001 ; Volkow et al. 1999b ), nicotina (Brody et al. 2009 ), alcohol (Boileau et al. 2003 ) y marihuana (Bossong et al. 2009 )] aumentan la DA en el estriado dorsal y ventral (donde se encuentra el NAc). Estos estudios aprovechan varios radiotrazadores, como [ 11C ]racloprida, que se unen al D2R pero solo cuando estos no se unen a la DA endógena (no ocupada), lo que en condiciones basales corresponde al 85-90% del D2R estriatal (Abi-Dargham et al. 1998 ). Por lo tanto, una comparación de la unión de [ 11 C]racloprida después del placebo y después de la administración del fármaco puede ayudarnos a estimar las disminuciones en la disponibilidad de D2R inducidas por el fármaco (u otros estímulos que pueden aumentar DA). Estas disminuciones en la unión de [ 11 C]racloprida son proporcionales a los aumentos de DA (Breier et al. 1997 ). Estos estudios han demostrado que los aumentos de DA inducidos por fármacos en el estriado son proporcionales a la intensidad de la experiencia subjetiva de euforia o “subidón” [ver revisión (Volkow et al. 2009a )] (Fig. 2 ).
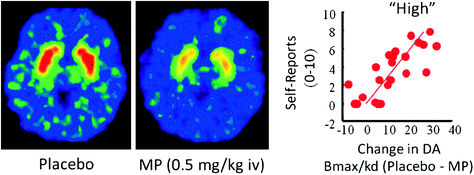
Figura 2. Efectos del metilfenidato intravenoso (MP) en la unión de racloprida y relación entre los aumentos de dopamina (DA) estriatal inducidos por MP en el estriado y los autoinformes de "euforia". Modificado de Volkow et al. ( 1999b ).
Los estudios PET también han revelado una relación clara y directa entre el perfil farmacocinético de un fármaco (es decir, la velocidad con la que entra y sale del cerebro) y sus efectos reforzadores. Específicamente, cuanto más rápido un fármaco alcanza niveles máximos en el cerebro, más intenso es el "subidón" (Volkow et al. 2009a ). Por ejemplo, para un nivel equivalente de cocaína que llega al cerebro (evaluado mediante PET), cuando la cocaína entró rápidamente al cerebro (fumada o administrada por vía intravenosa), provocó un "subidón" más intenso que cuando entró a un ritmo más lento (inhalada) (Volkow et al. 2000 ). Esto es consistente con estudios preclínicos que muestran una correlación similar entre el perfil farmacocinético de un fármaco y sus propiedades reforzadoras (Balster y Schuster 1973 ). Es razonable plantear la hipótesis de que tales aumentos abruptos y grandes de DA, como los provocados por las drogas de abuso, pueden imitar los aumentos rápidos y grandes de DA que resultan de la activación fásica de DA, la cual se ha asociado, en el cerebro, con el procesamiento de información sobre recompensa y relevancia (Schultz 2010 ). Estos aumentos de DA inducidos por drogas en el NAc pueden ser necesarios para la adicción, pero el hecho de que también ocurran en individuos no adictos indica que son insuficientes para explicar el consumo impulsivo y compulsivo de drogas característico de la adicción.
Ahora hay evidencia de que respuestas dopaminérgicas comparables están vinculadas con la recompensa alimentaria y que estos mecanismos también probablemente desempeñen un papel en el consumo excesivo de alimentos y la obesidad. Es bien sabido que ciertos alimentos, particularmente aquellos ricos en azúcares y grasas, son altamente gratificantes (Lenoir et al. 2007 ). Los alimentos altos en calorías pueden promover la sobrealimentación (alimentación desacoplada de las necesidades energéticas) y desencadenar asociaciones aprendidas entre el estímulo y la recompensa (condicionamiento). En términos evolutivos, esta propiedad de los alimentos apetitosos solía ser ventajosa en entornos donde las fuentes de alimento eran escasas o poco fiables, porque aseguraba que se consumiera alimento cuando estaba disponible, lo que permitía almacenar energía en el cuerpo (en forma de grasa) para su uso futuro. Desafortunadamente, en sociedades como la nuestra, donde el alimento es abundante y está constantemente disponible, esta adaptación se ha convertido en una desventaja.
Varios neurotransmisores, incluyendo DA, cannabinoides, opioides y serotonina, así como hormonas y neuropéptidos involucrados en la regulación homeostática de la ingesta de alimentos, como insulina, orexina, leptina y grelina, han sido implicados en los efectos gratificantes de la comida (Atkinson 2008 ; Cason et al. 2010 ; Cota et al. 2006 ). De estos, la DA ha sido la más investigada y es la mejor caracterizada. Experimentos en roedores han demostrado que, tras la primera exposición a una recompensa alimentaria, la descarga de neuronas DA en el VTA aumenta con un aumento resultante en la liberación de DA en el NAc (Norgren et al. 2006 ). De manera similar, en sujetos humanos sanos y con peso normal, se ha demostrado que la ingestión de alimentos apetitosos libera DA en el estriado dorsal en proporción a las calificaciones de agrado de la comida (Small et al. 2003 ) (Fig. 3 ). Sin embargo, y como se observa en estudios con personas que abusan de las drogas, el aumento de dopamina estriatal inducido por los alimentos por sí solo no puede explicar la diferencia entre la ingesta normal de alimentos y el consumo compulsivo excesivo, ya que estos también se presentan en individuos sanos que no comen en exceso. Por lo tanto, como ocurre en la adicción, es probable que existan adaptaciones posteriores implicadas en la pérdida de control sobre la ingesta de alimentos.
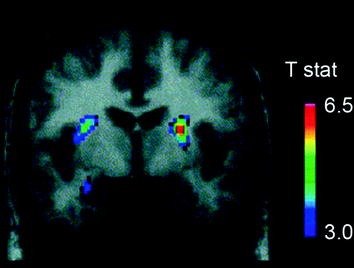
Figura 3. Liberación de dopamina inducida por la alimentación. Sección coronal del mapa T de reducciones estadísticamente significativas en el potencial de unión (BP) de [ ¹¹C ]racloprida tras la alimentación. La barra de color representa los valores estadísticos t. (Reproducido con permiso de Small et al., 2003 ).
3 Imágenes de DA en respuesta a drogas y señales condicionadas en adicción
El papel de la DA en el refuerzo es más complejo que simplemente codificar la recompensa en sí misma (placer hedónico); por ejemplo, los estímulos que inducen aumentos rápidos y grandes de DA también desencadenan respuestas condicionadas y generan motivación de incentivo para obtenerlas (Owesson-White et al. 2009 ). Esto es importante porque, a través del proceso de condicionamiento, los estímulos neutros que están vinculados al reforzador (ya sea un reforzador natural o farmacológico) adquieren la capacidad por sí mismos de aumentar la DA en el estriado (incluido el NAc) en anticipación de la recompensa, generando así una fuerte motivación para buscar la droga (Owesson-White et al. 2009 ). Sin embargo, desacoplar los mecanismos de recompensa y condicionamiento en el proceso de adicción a las drogas es más difícil que en el consumo de alimentos porque las drogas de abuso, a través de sus efectos farmacológicos, activan directamente las neuronas DA (es decir, la nicotina) o aumentan la liberación de DA (es decir, la anfetamina).
Estudios de neuroimagen que compararon los aumentos de DA inducidos por el estimulante metilfenidato (MP) o anfetamina (AMPH) entre sujetos adictos a la cocaína frente a controles mostraron una marcada atenuación de los aumentos de DA inducidos por MP o AMPH en el estriado (50% menor en los adictos desintoxicados y 80% en los adictos activos) y menores autoinformes de los efectos gratificantes de la droga en relación con los controles no adictos a drogas (Martinez et al. 2007 ; Volkow et al. 1997 ) (Fig. 4 ). Esto fue sorprendente ya que MP y AMPH son farmacológicamente similares a la cocaína y la metanfetamina, respectivamente, y los adictos a drogas no pueden distinguirlos cuando se administran por vía intravenosa. Dado que las marcadas reducciones en los aumentos de DA inducidos por la droga se observaron tanto si los adictos a la cocaína habían sido desintoxicados como si no, esto indica que el estado de abstinencia no es un factor de confusión (Volkow et al. 2011b ). Estos resultados y otros relacionados (Volkow et al. 2009a ) son consistentes con la hipótesis de que la respuesta hedónica se vuelve deficiente en individuos adictos a las drogas, y refuerzan aún más la idea de que los efectos farmacológicos agudos de mejora de la DA de la droga en el NAc no pueden explicar por sí solos el aumento de la motivación para consumirlas.
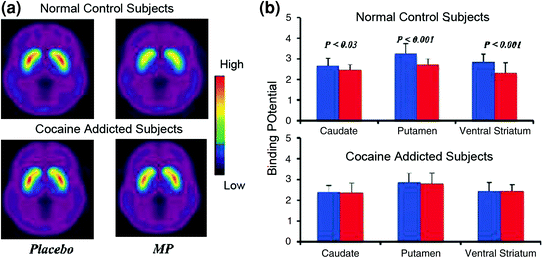
Fig. 4 Cambios de DA inducidos por MP iv en controles y en sujetos adictos a la cocaína activos . a Imágenes promedio del potencial de unión no desplazable (BPND) de [ 11 C]racloprida en sujetos adictos a la cocaína activos (n = 19) y en controles (n = 24) evaluados después de placebo y después de MP iv. b Disponibilidad de D2R (BPND) en el núcleo caudado, putamen y estriado ventral después de placebo (azul) y después de MP (rojo) en controles y en sujetos adictos a la cocaína. MP redujo D2R en controles pero no en sujetos adictos a la cocaína. Nótese que los consumidores de cocaína muestran disminuciones en la disponibilidad basal de D2R estriatal (medida con placebo) y disminuciones en la liberación de DA cuando se les administra MP iv (medida como disminuciones en la disponibilidad de D2R desde el valor basal). Si bien podría cuestionarse hasta qué punto la baja disponibilidad de D2R estriatal en sujetos adictos a la cocaína limita la capacidad de detectar disminuciones adicionales por MP, el hecho de que estos sujetos muestren reducciones en la disponibilidad de D2R al ser expuestos a señales de cocaína indica que los efectos atenuados de MP sobre la unión de [ 11C ]racloprida reflejan una disminución en la liberación de DA. Reimpreso con permiso (Volkow et al. 1997 ; Wang et al. 2010 ).
La respuesta de las neuronas VTA DA a estímulos gratificantes cambia con la exposición repetida.
Mientras que las células DA se activan ante la primera exposición a una recompensa novedosa, la exposición repetida a DA hace que las neuronas dejen de activarse al consumir la recompensa y se activen en cambio cuando se exponen a estímulos que predicen la recompensa (Schultz et al. 1997 ). Es probable que esto explique el papel de la DA en el aprendizaje y el condicionamiento. De hecho, la señalización fásica de DA inducida por drogas puede eventualmente desencadenar neuroadaptaciones en circuitos auxiliares relacionados con la formación de hábitos y el condicionamiento conductual. Estos cambios son inducidos predominantemente por la señalización del receptor D1 y cambios sinápticos en los receptores NMDA y AMPA modulados por glutamato (Luscher y Malenka 2011 ; Zweifel et al. 2009 ). El reclutamiento de estos circuitos es significativo en la progresión de la enfermedad porque las respuestas condicionadas resultantes ayudan a explicar el intenso deseo por la droga (ansiedad) y el uso compulsivo que ocurre cuando los sujetos adictos se exponen a señales asociadas con la droga. Esta hipótesis es consistente con observaciones independientes (Volkow et al. 2006b ; Wong et al. 2006 ) que muestran el poder de la exposición a señales asociadas a la cocaína para elevar los niveles de DA en el estriado dorsal y desencadenar un aumento concomitante en la experiencia subjetiva de ansia en adictos a la cocaína desintoxicados (Fig. 5 ). Dado que el estriado dorsal desempeña un papel en el aprendizaje de hábitos (Belin et al. 2009 ; Yin et al. 2004 ), es probable que la asociación refleje el fortalecimiento de los hábitos a medida que progresa la cronicidad de la adicción. Esto sugiere que una alteración básica en la adicción podría estar relacionada con las respuestas condicionadas desencadenadas por la DA que dan lugar a hábitos que conducen a una intensa ansia y al consumo compulsivo de drogas. Curiosamente, en sujetos adictos a la cocaína que consumen activamente, los aumentos de DA desencadenados por señales condicionadas parecen ser incluso mayores que los producidos por la propia droga estimulante, según se evaluó en dos grupos separados de sujetos (Volkow et al. 2011b , 2006b ), lo que sugiere que las respuestas condicionadas pueden impulsar la señalización de DA que mantiene la motivación para tomar la droga incluso cuando sus efectos farmacológicos parecen estar reducidos . Por lo tanto, aunque las drogas pueden inducir inicialmente sensaciones de recompensa inmediata a través de la liberación de DA en el estriado ventral, con el uso repetido, y a medida que se desarrolla el hábito, parece haber un cambio de la droga al estímulo condicionado. Según estudios en animales de laboratorio, las proyecciones glutamatérgicas de la corteza prefrontal y de la amígdala hacia el VTA/SN y el NAc median estas respuestas condicionadas (Kalivas 2009 ). De esta manera, la mera predicción de una recompensa puede eventualmente convertirse en la recompensa que motiva el comportamiento necesario para el consumo de drogas (o alimentos).
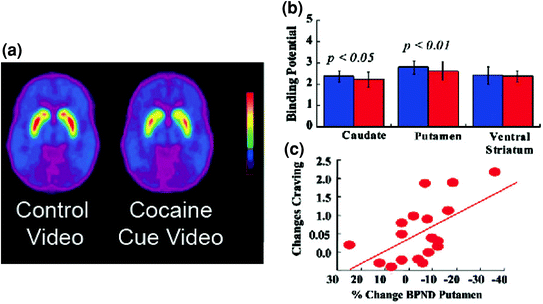
Fig. 5 Cambios en la DA inducidos por señales condicionadas en sujetos adictos a la cocaína activos . a Imágenes promedio del potencial de unión no desplazable (BPND) de [11C]racloprida en sujetos adictos a la cocaína (n = 17) evaluados mientras veían un video neutro (escenas de la naturaleza) y mientras veían un video con señales de cocaína (sujetos administrándose cocaína). b Disponibilidad de D2R (BPND) en el núcleo caudado, el putamen y el estriado ventral para el video neutro (azul) y el video con señales de cocaína (rojo). Las señales de cocaína disminuyeron la disponibilidad de D2R en el núcleo caudado y el putamen. c Correlaciones entre los cambios en D2R (que reflejan aumentos de DA) y los autoinformes de deseo de cocaína inducidos por el video con señales de cocaína. Modificado de la referencia (Volkow et al. 2006b ).
Curiosamente , este tipo de “interruptor” funcional también se ha descrito para reforzadores naturales, que probablemente inducen un cambio equivalente y gradual en los aumentos de DA, desde regiones ventrales a regiones más dorsales del estriado durante la transición de un estímulo novedoso que es inherentemente gratificante a las señales asociadas que lo predicen. Esta transición se transmite a través de la señalización de DA, que parece codificar un “error de predicción de recompensa” (Schultz 2010 ). Las extensas aferencias glutamatérgicas a las neuronas DA de regiones involucradas en el procesamiento de información sensorial (ínsula o corteza gustativa primaria), homeostática (hipotálamo), de recompensa (NAc), emocional (amígdala e hipocampo) y multimodal (corteza orbitofrontal para la atribución de saliencia), modulan su actividad en respuesta a recompensas y señales condicionadas (Geisler y Wise 2008 ). Más específicamente, las proyecciones de la amígdala y la corteza orbitofrontal (COF) a las neuronas DA y al NAc están involucradas en las respuestas condicionadas a la comida (Petrovich 2010 ). De hecho, estudios de neuroimagen mostraron que cuando se les pidió a sujetos varones no obesos que inhibieran su deseo de comer —mientras se les exponía a estímulos relacionados con la comida—, exhibieron una disminución de la actividad metabólica en la amígdala y la COF (así como en el hipocampo), la ínsula y el estriado, y que las disminuciones en la COF se asociaron con reducciones en el deseo de comer (Wang et al. 2009 ). Una inhibición similar de la actividad metabólica en la COF (y también en el NAc) se ha observado en consumidores de cocaína cuando se les pidió que inhibieran su deseo de droga al exponerse a estímulos relacionados con la cocaína (Volkow et al. 2009b ).
Aún así, la aparición de tales antojos poderosamente condicionados, que también se producen en personas sanas que no comen de más, no sería tan devastadora si no se juntaran con déficits crecientes en la capacidad del cerebro para inhibir conductas de mala adaptación.
4 El impacto de la disfunción en el control inhibitorio
La capacidad de inhibir respuestas prepotentes contribuirá sin duda a la capacidad de un individuo para evitar participar en comportamientos inapropiados, como tomar drogas o comer más allá del punto de saciedad, y por lo tanto aumentar su vulnerabilidad a la adicción (o la obesidad) (Volkow y Fowler 2000 ; Volkow et al. 2008a ).
Los estudios PET han revelado reducciones significativas en la disponibilidad de D2R en el estriado de sujetos adictos que persisten durante meses después de una desintoxicación prolongada [revisado en (Volkow et al. 2009a )]. De manera similar, estudios preclínicos en roedores y primates no humanos han demostrado que las exposiciones repetidas a drogas están asociadas con reducciones en los niveles de D2R estriatales (Nader et al. 2006 ; Thanos et al. 2007 ; Volkow et al. 2001 ). En el estriado, los D2R median la señalización en la vía indirecta estriatal que modula las regiones prefrontales; y se ha demostrado que su regulación negativa aumenta la sensibilización a los efectos de las drogas en modelos animales (Ferguson et al. 2011 ). En humanos adictos a las drogas, la reducción de D2R estriatal se asocia con una disminución de la actividad de las regiones prefrontales, como lo demuestran las disminuciones en el metabolismo basal de la glucosa (un marcador de la función cerebral) en OFC, giro cingulado anterior (ACC) y corteza prefrontal dorsolateral (DLPFC) (Volkow et al. 2001 , 1993 , 2007 ) (Fig. 6 ). Dado que OFC, ACC y DLPFC están involucrados con la atribución de saliencia, el control inhibitorio/regulación emocional y la toma de decisiones, respectivamente, se ha postulado que su regulación inadecuada por la señalización DA mediada por D2R en sujetos adictos podría subyacer al valor motivacional aumentado de las drogas en su comportamiento y la pérdida de control sobre la ingesta de drogas (Volkow y Fowler 2000 ). Además, dado que las alteraciones en la OFC y la ACC se asocian con conductas compulsivas e impulsividad (Fineberg et al. 2009 ), es probable que la alteración en la modulación de estas regiones por parte de la DA contribuya al consumo compulsivo e impulsivo de drogas observado en la adicción (Goldstein y Volkow 2002 ). De hecho, en consumidores de metanfetamina, la baja expresión de D2R estriatal se asoció con impulsividad (Lee et al. 2009 ), y también predijo la administración compulsiva de cocaína en roedores (Everitt et al. 2008 ). También es posible un escenario inverso, en el que una vulnerabilidad inicial al consumo de drogas preexiste en las regiones prefrontales, y en el que el consumo repetido de drogas desencadena mayores disminuciones en la expresión de D2R estriatal. De hecho, un estudio realizado en sujetos que, a pesar de tener un alto riesgo de alcoholismo (antecedentes familiares positivos de alcoholismo), no eran alcohólicos, reveló una disponibilidad de D2R estriatal superior a la normal, asociada a un metabolismo normal en la OFC, la ACC y la DLPFC (Volkow et al., 2006a ). Esto sugiere que, en estos sujetos con riesgo de alcoholismo, la función prefrontal normal estaba vinculada a una señalización de D2R estriatal mejorada, lo que a su vez podría haberlos protegido del abuso de alcohol.
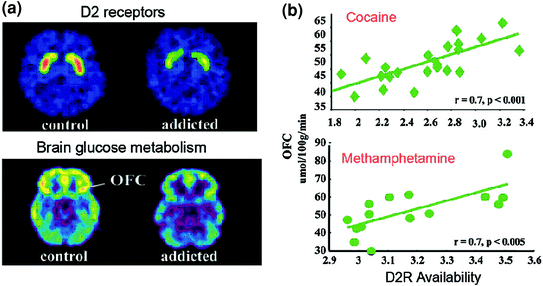
Figura 6. Correlaciones entre la disponibilidad de D2R estriatal y el metabolismo en regiones cerebrales prefrontales. a Imágenes axiales del cerebro de un sujeto control y de un sujeto adicto a la cocaína para imágenes basales de la disponibilidad de D2R en el estriado (obtenidas con [ 11C ]racloprida) y del metabolismo de la glucosa cerebral en la corteza orbitofrontal (obtenidas con [ 18FDG ]). b Correlaciones entre D2R estriatal y el metabolismo en la corteza orbitofrontal en sujetos adictos a la cocaína y a la metanfetamina. Reimpreso de Volkow et al. ( 2009a ). Copyright (2009), con permiso de Elsevier.
Como era de esperar, también se han encontrado evidencias de desregulación en los circuitos de control entre individuos obesos. Tanto los estudios preclínicos como los clínicos han proporcionado evidencia de una disminución de la señalización del receptor D2 estriatal, que, como se mencionó anteriormente, está relacionada con la recompensa (NAc) pero también con el establecimiento de hábitos y rutinas (estriado dorsal) en la obesidad (Geiger et al. 2009 ; Wang et al. 2001 ). Es importante destacar que la disminución de la disponibilidad del receptor D2 estriatal se ha relacionado con la ingesta compulsiva de alimentos en roedores obesos (Johnson y Kenny 2010 ) y con una disminución de la actividad metabólica en la corteza orbitofrontal (OFC) y la corteza cingulada anterior (ACC) en humanos obesos (Volkow et al. 2008b ) (Fig. 7 a-c). Dado que la disfunción en la OFC y la ACC produce compulsividad [véase la revisión (Fineberg et al. 2009 )], esto podría ser parte del mecanismo por el cual la baja señalización del D2R estriatal facilita la hiperfagia (Davis et al. 2009 ). Además, dado que la disminución de la señalización relacionada con el D2R también probablemente reduce la sensibilidad a otras recompensas naturales, este déficit en individuos obesos también podría contribuir a la sobrealimentación compensatoria (Geiger et al. 2008 ).
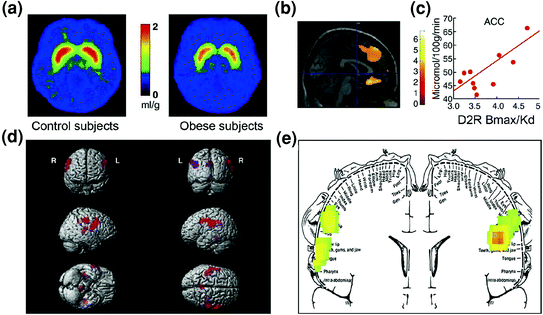
Fig. 7 La hiperfagia podría resultar de un impulso para compensar un circuito de recompensa debilitado (procesado a través de circuitos corticoestriatales regulados por dopamina) combinado con una mayor sensibilidad a la palatabilidad (propiedades hedónicas de los alimentos procesadas en parte a través de la corteza somatosensorial) . a Imágenes promedio para la disponibilidad del receptor DA D2 (D2R) en controles (n = 10) y en sujetos con obesidad mórbida (n = 10). b Resultados de (Mapeo Paramétrico Estadístico) SPM que identifican las áreas en el cerebro donde D2R se asoció con el metabolismo de la glucosa, estas incluyeron la OFC medial, ACC y la PFC dorsolateral (región no mostrada). c Pendiente de regresión entre D2R estriatal y actividad metabólica en ACC en sujetos obesos. d Imágenes SPM renderizadas tridimensionalmente que muestran las áreas con mayor metabolismo en sujetos obesos que en sujetos delgados (P < 0.003, sin corregir). Resultados de SPM codificados por colores mostrados en un plano coronal con un diagrama superpuesto del homúnculo somatosensorial. Los resultados (valor z) se presentan utilizando la escala del arco iris, donde rojo > amarillo > verde. En comparación con sujetos delgados, los sujetos obesos presentaron un metabolismo basal más elevado en las áreas somatosensoriales donde se representan la boca, los labios y la lengua, y que participan en el procesamiento de la palatabilidad de los alimentos. Modificado, con permiso, de Volkow et al. ( 2008a ) (a–c) y Wang et al. ( 2002 ) (d, e).
Esta hipótesis es consistente con la evidencia preclínica que muestra que la disminución de la actividad DA en VTA resulta en un aumento drástico en el consumo de alimentos ricos en grasas (Stoeckel et al. 2008 ). De manera similar, en comparación con individuos de peso normal, los individuos obesos a quienes se les presentaron imágenes de alimentos altos en calorías (estímulos a los que están condicionados) mostraron una mayor activación neuronal en regiones que forman parte de los circuitos de recompensa y motivación (NAc, estriado dorsal, OFC, ACC, amígdala, hipocampo e ínsula) (Killgore y Yurgelun-Todd 2005 ). Por el contrario, en los controles de peso normal, se encontró que la activación de la ACC y la OFC (regiones involucradas en la atribución de saliencia que se proyectan al NAc) durante la presentación de alimentos altos en calorías estaba correlacionada negativamente con su índice de masa corporal (IMC) (Stice et al. 2008b ). Esto sugiere una interacción dinámica entre la cantidad de alimentos ingeridos (reflejada en parte en el IMC) y la reactividad de las regiones de recompensa a los alimentos ricos en calorías (reflejada en la activación de la OFC y la ACC) en individuos con peso normal, interacción que se pierde en la obesidad.
Sorprendentemente, los individuos obesos mostraron una menor activación de los circuitos de recompensa por el consumo real de alimentos (denominada recompensa alimentaria consumatoria) que los individuos delgados, mientras que mostraron una mayor activación de las regiones corticales somatosensoriales que procesan la palatabilidad cuando anticipaban el consumo (Stice et al. 2008b ). Esta última observación correspondió a regiones donde un estudio previo había revelado una mayor actividad en sujetos obesos evaluados en condiciones basales (sin estimulación) (Wang et al. 2002 ) (Fig. 7 d, e). Una mayor actividad de las regiones que procesan la palatabilidad podría hacer que los sujetos obesos prefieran la comida sobre otros reforzadores naturales, mientras que una menor activación de los objetivos dopaminérgicos por el consumo real de alimentos podría conducir a un consumo excesivo como medio para compensar la débil señalización mediada por D2R (Stice et al. 2008a ). Esta respuesta reducida del circuito de recompensa al consumo de alimentos en sujetos obesos recuerda a los menores aumentos de DA desencadenados por el consumo de drogas en individuos adictos en comparación con sujetos no adictos.
La corteza prefrontal (CPF) desempeña un papel crucial en la función ejecutiva, incluido el control inhibitorio (Miller y Cohen 2001 ). Estos procesos están modulados por los receptores D1R y D2R (presumiblemente también D4R) y, por lo tanto, la disminución de la actividad en la CPF, tanto en la adicción como en la obesidad, probablemente contribuya a un control deficiente y una alta compulsividad. La menor disponibilidad de D2R en el estriado de individuos obesos, que se ha asociado con una actividad reducida en la CPF y la corteza cingulada anterior (CCA) (Volkow et al. 2008b ), probablemente contribuya a su control deficiente sobre la ingesta de alimentos. De hecho, la correlación negativa entre el IMC y el D2R estriatal reportada en individuos obesos (Wang et al. 2001 ) y en individuos con sobrepeso (Haltia et al. 2007a ) respalda esta hipótesis. Una mejor comprensión de los mecanismos que conducen al deterioro de la función de la corteza prefrontal en la obesidad (o la adicción) podría facilitar el desarrollo de estrategias para mejorar, o incluso revertir, deterioros específicos en dominios cognitivos cruciales. Por ejemplo, el descuento temporal, que es la tendencia a devaluar una recompensa en función del retraso temporal en su entrega, es una de las operaciones cognitivas más investigadas en relación con los trastornos asociados con la impulsividad y la compulsividad. El descuento temporal se ha investigado exhaustivamente en drogadictos que muestran una preferencia exagerada por recompensas pequeñas pero inmediatas sobre recompensas grandes pero demoradas (Bickel et al. 2007 ). Sin embargo, los pocos estudios realizados con individuos obesos también han encontrado evidencia de una preferencia por recompensas altas e inmediatas, a pesar de una mayor probabilidad de sufrir mayores pérdidas futuras (Brogan et al. 2010 ; Weller et al. 2008 ). Y más recientemente, otro estudio encontró una correlación positiva entre el IMC y el descuento hiperbólico, por el cual las recompensas negativas futuras se descuentan menos que las recompensas positivas futuras (Ikeda et al. 2010 ). Curiosamente, el descuento por demora parece depender de la función del estriado ventral (Gregorios-Pippas et al. 2009 ) y de la corteza prefrontal, incluyendo la corteza orbitofrontal lateral (Bjork et al. 2009 ), y es sensible a las manipulaciones de DA (Pine et al. 2010 ). Específicamente, mejorar la señalización de DA (con el tratamiento con L-DOPA) aumentó la impulsividad y el descuento temporal.
5 Implicación de los circuitos de motivación.
La señalización dopaminérgica también modula la motivación. Rasgos conductuales como el vigor, la persistencia y el esfuerzo continuo para lograr una meta, están sujetos a la modulación de la DA que actúa a través de varias regiones diana, incluyendo NAc, ACC, OFC, DLPFC, amígdala, estriado dorsal y pálido ventral (Salamone et al. 2007 ). La señalización de DA desregulada se asocia con una mayor motivación para obtener drogas, un sello distintivo de la adicción, razón por la cual las personas adictas a las drogas a menudo se involucran en comportamientos extremos para obtener drogas, incluso cuando conllevan consecuencias graves y adversas conocidas (Volkow y Li 2005 ). Debido a que el consumo de drogas se convierte en el principal impulso motivacional en la adicción a las drogas (Volkow et al. 2003 ), los sujetos adictos se excitan y motivan por el proceso de obtener la droga, pero tienden a retraerse y apáticos cuando se exponen a actividades no relacionadas con las drogas. Este cambio se ha estudiado comparando los patrones de activación cerebral que ocurren con la exposición a señales condicionadas con aquellos que ocurren en ausencia de dichas señales. A diferencia de las disminuciones en la actividad prefrontal reportadas en adictos a la cocaína desintoxicados cuando no son estimulados con drogas o señales relacionadas con las drogas [ver revisión (Volkow et al. 2009a )], estas regiones prefrontales se activan cuando los adictos a la cocaína son expuestos a estímulos que inducen el deseo (ya sean drogas o señales) (Grant et al. 1996 ; Volkow et al. 1999a ; Wang et al. 1999 ). Este resultado recuerda la observación de que los adictos a la cocaína, estudiados poco después de un episodio de consumo excesivo de cocaína, mostraron un aumento en la actividad metabólica en la OFC y la ACC (también el estriado dorsal) que se asoció con el deseo (Volkow et al. 1991 ).
Además, cuando se comparan las respuestas a la MP intravenosa entre individuos adictos a la cocaína y no adictos, los primeros respondieron con un aumento del metabolismo en la ACC ventral y la OFC medial (un efecto asociado con el deseo compulsivo), mientras que los segundos mostraron la respuesta opuesta, es decir, una disminución del metabolismo en estas regiones (Volkow et al. 2005 ). Esto sugiere que la activación de estas regiones prefrontales con la exposición a la droga puede ser específica de la adicción y estar asociada con el aumento del deseo por la droga. Además, un estudio que indujo a sujetos adictos a la cocaína a inhibir intencionalmente el deseo compulsivo cuando se exponían a estímulos relacionados con la droga mostró que aquellos sujetos que lograron inhibir el deseo compulsivo mostraron una disminución del metabolismo en la OFC medial (que procesa el valor motivacional de un reforzador) y el NAc (que predice la recompensa) (Volkow et al. 2009b ). Estos hallazgos corroboran aún más la participación de la OFC, la ACC y el estriado en la mayor motivación para obtener la droga observada en la adicción.
Como era de esperar, la OFC también se ha visto implicada en la atribución de valor de relevancia a los alimentos (Grabenhorst et al. 2008 ; Rolls y McCabe 2007 ), ayudando a evaluar su agrado y palatabilidad esperados en función de su contexto. Estudios de PET con FDG para medir el metabolismo de la glucosa cerebral en individuos con peso normal informaron que la exposición a señales alimentarias aumentó la actividad metabólica en la OFC, un efecto asociado con la percepción del hambre y el deseo de comer (Wang et al. 2004 ). Es probable que la mayor activación de la OFC por la estimulación alimentaria refleje efectos dopaminérgicos posteriores y participe en la implicación de la DA en el impulso por el consumo de alimentos. La corteza orbitofrontal (COF) desempeña un papel en el aprendizaje de asociaciones estímulo-refuerzo y en el condicionamiento (Cox et al. 2005 ; Gallagher et al. 1999 ), apoya la alimentación inducida por señales condicionadas (Weingarten 1983 ) y probablemente contribuye a la sobrealimentación independientemente de las señales de hambre (Ogden y Wardle 1990 ). De hecho, la disfunción de la COF se ha relacionado con la sobrealimentación (Machado y Bachevalier 2007 ).
A pesar de algunas inconsistencias entre los estudios, los datos de neuroimagen también respaldan la noción de que los cambios estructurales y funcionales en las regiones cerebrales implicadas en la función ejecutiva (incluido el control inhibitorio) pueden estar asociados con un IMC alto en individuos por lo demás sanos. Por ejemplo, un estudio de resonancia magnética realizado en mujeres mayores, utilizando morfometría basada en vóxeles, encontró una correlación negativa entre el IMC y los volúmenes de materia gris (incluidas las regiones frontales), que, en la OFC, se asoció con una función ejecutiva deteriorada (Walther et al. 2010 ). Utilizando PET para medir el metabolismo de la glucosa cerebral en controles sanos, informamos una correlación negativa entre el IMC y la actividad metabólica en la DLPFC, OFC y ACC. En este estudio, la actividad metabólica en las regiones prefrontales predijo el rendimiento de los sujetos en pruebas de función ejecutiva (Volkow et al. 2009c ). De manera similar, un estudio espectroscópico de resonancia magnética nuclear (RMN) en controles sanos de mediana edad y ancianos mostró que el IMC estaba asociado negativamente con los niveles de N-acetil-aspartato (un marcador de integridad neuronal) en la corteza frontal y la ACC (Gazdzinski et al. 2008 ; Volkow et al. 2009c ).
Estudios de neuroimagen que comparan individuos obesos y delgados también han reportado una menor densidad de materia gris en regiones frontales (opérculo frontal y giro frontal medio) y en giro postcentral y putamen (Pannacciulli et al. 2006 ). Otro estudio no encontró diferencias en los volúmenes de materia gris entre sujetos obesos y delgados; sin embargo, sí registró una correlación positiva entre el volumen de materia blanca en estructuras cerebrales basales y la relación cintura-cadera, una tendencia que se revirtió parcialmente con la dieta (Haltia et al. 2007b ). Curiosamente, se ha descubierto que áreas corticales, como la DPFC y la OFC, que están involucradas en el control inhibitorio, también se activan en personas que logran adelgazar en respuesta al consumo de alimentos (DelParigi et al. 2007 ), lo que sugiere un objetivo potencial para el reentrenamiento conductual en el tratamiento de la obesidad (y también en la adicción).
6 Implicación del circuito interoceptivo
Estudios de neuroimagen han revelado que la ínsula media juega un papel crítico en los antojos de comida, cocaína y cigarrillos (Bonson et al. 2002 ; Pelchat et al. 2004 ; Wang et al. 2007 ). La importancia de la ínsula ha sido resaltada por un estudio que informó que los fumadores con daño en esta región (pero no los fumadores de control que habían sufrido lesiones extrainsulares) pudieron dejar de fumar fácilmente y sin experimentar antojos ni recaídas (Naqvi et al. 2007 ). La ínsula, particularmente sus regiones más anteriores, está conectada recíprocamente con varias regiones límbicas (por ejemplo, corteza prefrontal ventromedial, amígdala y estriado ventral) y parece tener una función interoceptiva, integrando la información autonómica y visceral con la emoción y la motivación, proporcionando así una conciencia de estos impulsos (Naqvi y Bechara 2009 ). De hecho, estudios de lesiones cerebrales sugieren que la corteza prefrontal ventromedial y la ínsula son componentes necesarios de los circuitos distribuidos que sustentan la toma de decisiones emocionales (Clark et al. 2008 ). En consonancia con esta hipótesis, estudios de neuroimagen muestran consistentemente una activación diferencial de la ínsula durante el deseo compulsivo (Brody et al. 2009 ; Goudriaan et al. 2010 ; Naqvi y Bechara 2009 ; Wang et al. 1999 ). Por consiguiente, se ha sugerido que la reactividad de esta región cerebral podría servir como biomarcador para predecir la recaída (Janes et al. 2010 ).
La ínsula es también un área gustativa primaria, que participa en muchos aspectos de los comportamientos alimentarios, como el gusto. Además, la ínsula rostral (conectada a la corteza gustativa primaria) proporciona información a la OFC que influye en su representación multimodal del agrado o valor de recompensa de los alimentos ingeridos (Rolls 2008 ). Debido a la implicación de la ínsula en el sentido interoceptivo del cuerpo, en la conciencia emocional (Craig 2003 ) y en la motivación y la emoción (Rolls 2008 ), cabría esperar una contribución del deterioro insular en la obesidad. De hecho, la distensión gástrica produce la activación de la ínsula posterior, lo que probablemente refleje su papel en la conciencia de los estados corporales (en este caso, de saciedad) (Wang et al. 2008 ). Además, en sujetos delgados, pero no en obesos, la distensión gástrica produjo la activación de la amígdala y la desactivación de la ínsula anterior (Tomasi et al. 2009 ). La falta de respuesta de la amígdala en sujetos obesos podría reflejar una conciencia interoceptiva atenuada de los estados corporales vinculados con la saciedad (estómago lleno). Aunque la modulación de la actividad insular por DA ha sido poco investigada, se reconoce que DA está involucrada en las respuestas a la degustación de alimentos apetitosos que están mediadas a través de la ínsula (Hajnal y Norgren 2005 ). Estudios de neuroimagen en humanos han demostrado que la degustación de alimentos apetitosos activaba la ínsula y las áreas del mesencéfalo (DelParigi et al. 2005 ; Frank et al. 2008 ). Sin embargo, la señalización de DA también puede ser necesaria para detectar el contenido calórico de los alimentos. Por ejemplo, cuando mujeres con peso normal degustaron un edulcorante con calorías (sacarosa), tanto la ínsula como las áreas dopaminérgicas del mesencéfalo se activaron, mientras que degustar un edulcorante sin calorías (sucralosa) solo activó la ínsula (Frank et al. 2008 ). Los sujetos obesos presentan una mayor activación de la ínsula que los controles normales al degustar una comida líquida compuesta de azúcar y grasa (DelParigi et al., 2005 ). Por el contrario, los sujetos que se han recuperado de la anorexia nerviosa muestran menor activación de la ínsula al degustar sacarosa y no presentan la misma asociación entre la sensación de placer y la activación de la ínsula que los controles normales (Wagner et al., 2008 ). En conjunto, estos resultados sugieren que la desregulación de la ínsula en respuesta a los estímulos gustativos podría estar implicada en el control deficiente de diversas conductas apetitivas.
7 El circuito de la aversión
Como se mencionó anteriormente, el entrenamiento (condicionamiento) en una señal que predice una recompensa lleva a que las células dopaminérgicas se activen en respuesta a la predicción de la recompensa, y no a la recompensa en sí. Por otro lado, y de acuerdo con esta lógica, se ha observado que las células dopaminérgicas se activan menos de lo normal si la recompensa esperada no se materializa (Schultz et al. 1997 ). La evidencia acumulada (Christoph et al. 1986 ; Lisoprawski et al. 1980 ; Matsumoto y Hikosaka 2007 ; Nishikawa et al. 1986 ) apunta a la habénula como una de las regiones que controla la disminución en la activación de las células dopaminérgicas en el VTA que puede ocurrir después de no recibir una recompensa esperada (Kimura et al. 2007 ). Por lo tanto, una mayor sensibilidad de la habénula, como resultado de la exposición crónica a drogas, podría subyacer a una mayor reactividad a las señales relacionadas con las drogas. De hecho, la activación de la habénula, en sujetos adictos a la cocaína, se ha asociado con la recaída conductual en el consumo de drogas tras la exposición a señales (Brown et al. 2011 ; Zhang et al. 2005 ). En el caso de la nicotina, los receptores nicotínicos α5 en la habénula parecen modular las respuestas aversivas a grandes dosis de nicotina (Fowler et al. 2011 ); y los receptores α5 y α2 en la habénula están implicados en la abstinencia de nicotina (Salas et al. 2009 ). Debido a la respuesta opuesta de la habénula a la de las neuronas DA ante la recompensa (desactivación) y su activación tras la exposición a estímulos aversivos, nos referimos aquí a la señalización de la habénula como una que transmite una entrada "antirrecompensa".
La habénula parece desempeñar un papel similar con respecto a la recompensa alimentaria. Una dieta de alimentos muy apetecibles puede inducir obesidad en ratas, y los aumentos de peso se correlacionan con aumentos en la unión del péptido μ-opioide en la amígdala basolateral y basomedial. Curiosamente, la habénula medial mostró una unión del péptido μ-opioide significativamente mayor (aproximadamente un 40%) después de la exposición a la comida apetecible en las ratas que ganaron peso (las que consumieron más comida) pero no en las que no lo hicieron (Smith et al. 2002 ). Esto sugiere que la habénula puede estar involucrada en la sobrealimentación en condiciones de disponibilidad de comida apetecible. Además, las neuronas en el núcleo tegmental rostromedial, que reciben una entrada principal de la habénula lateral, se proyectan a las neuronas DA del VTA y se activan después de la privación de alimentos (Jhou et al. 2009 ). Estos hallazgos son consistentes con la hipótesis de que la habénula desempeña un papel en la mediación de las respuestas a estímulos o estados aversivos, como los que se producen durante las dietas o la abstinencia de drogas.
La implicación de la habénula como centro de antirrecompensa dentro de las redes emocionales es coherente con modelos teóricos previos de adicción que postulaban respuestas de antirrecompensa sensibilizadas (mediadas por una mayor sensibilidad de la amígdala y una mayor señalización a través del factor liberador de corticotropina) como impulsoras del consumo de drogas en la adicción (Koob y Le Moal 2008 ). Respuestas de antirrecompensa similares también podrían contribuir al consumo excesivo de alimentos en la obesidad.
8 Medicamento patológico y recompensa de alimentos: un modelo de trabajo actualizado
La capacidad de resistir el impulso de consumir una droga o comer en exceso requiere el correcto funcionamiento de los circuitos neuronales implicados en el control descendente para contrarrestar las respuestas condicionadas que predicen la recompensa por la ingesta del alimento/droga y el deseo de ingerirlo. Aquí, destacamos seis de estos circuitos: recompensa/saliencia, condicionamiento/hábitos, control inhibitorio/función ejecutiva, motivación/impulso, interocepción y evitación aversiva/reactividad al estrés (Fig. 8 ). Basándonos en los datos de neuroimagen presentados aquí, postulamos que es la discrepancia entre la expectativa de los efectos de la droga/alimento (respuestas condicionadas) y los efectos neurofisiológicos atenuados lo que mantiene el consumo de drogas o el consumo excesivo de alimentos en un intento por alcanzar la recompensa esperada. Además, tanto en periodos iniciales como prolongados de abstinencia/dieta, los sujetos adictos/obesos muestran niveles más bajos de D2R en el estriado (incluido el NAc), lo que se asocia con disminuciones en la actividad basal en regiones cerebrales frontales implicadas en la atribución de relevancia (corteza orbitofrontal) y el control inhibitorio (ACC y DLPFC), cuya alteración produce compulsividad e impulsividad. Finalmente , también ha surgido evidencia sobre el papel de los circuitos interoceptivos y aversivos en los desequilibrios sistémicos que resultan en el consumo compulsivo de drogas o alimentos.
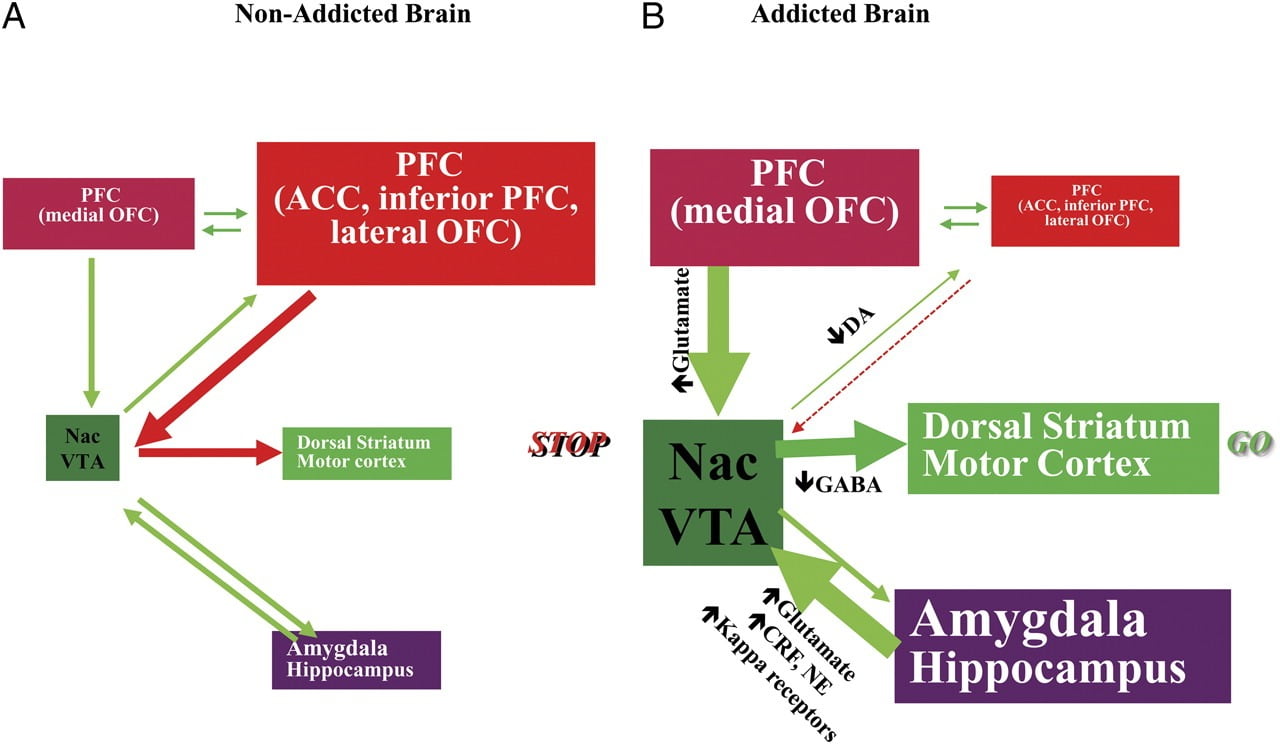
Fig. 8 Modelo que propone una red de circuitos interactuantes, disrupciones que contribuyen al conjunto complejo de comportamientos estereotipados subyacentes a la adicción a las drogas y la sobrealimentación crónica: recompensa (núcleo accumbens, VTA y pálido ventral), condicionamiento/memoria (amígdala, OFC medial para la atribución de saliencia, hipocampo y estriado dorsal para los hábitos), control ejecutivo (DLPFC, ACC, corteza frontal inferior y OFC lateral), motivación/impulso (OFC medial para la atribución de saliencia, ACC ventral, VTA, SN, estriado dorsal y corteza motora). Nac, núcleo accumbens, interocepción (ínsula y ACC) y aversión/evitación (habénula). a Cuando estos circuitos están equilibrados, esto da como resultado un control inhibitorio y una toma de decisiones adecuados. b Durante la adicción, cuando el valor de expectativa aumentado de la droga en los circuitos de recompensa, motivación y memoria supera el circuito de control, se favorece un bucle de retroalimentación positiva iniciado por el consumo de la droga y perpetuado por la mayor activación de los circuitos de motivación/impulso y memoria. Estos circuitos también interactúan con circuitos involucrados en la regulación del estado de ánimo, incluyendo la reactividad al estrés (que involucra la amígdala, el hipotálamo y la habénula) y la interocepción (que involucra la ínsula y la corteza cingulada anterior y contribuye a la conciencia del deseo). Varios neurotransmisores están implicados en estas neuroadaptaciones, incluyendo el glutamato, el GABA, la norepinefrina, el factor liberador de corticotropina y los receptores opioides. CRF, factor liberador de corticotropina; NE, norepinefrina. Modificado con permiso de Volkow et al. ( 2011b ).
Como consecuencia de la interrupción secuencial en estos circuitos, los individuos pueden experimentar 1) un valor motivacional mejorado de la droga/alimento (secundario a asociaciones aprendidas a través del condicionamiento y los hábitos) a expensas de otros reforzadores (secundario a una sensibilidad reducida del circuito de recompensa), 2) una capacidad deteriorada para inhibir las acciones intencionales (dirigidas a un objetivo) desencadenadas por el fuerte deseo de tomar la droga/alimento (secundario a una función ejecutiva deteriorada) que resultan en la toma compulsiva de la droga/alimento, y 3) una mayor reactividad al estrés y evitación aversiva que resulta en la toma impulsiva de la droga para escapar del estado aversivo.
Este modelo sugiere un enfoque terapéutico múltiple para la adicción diseñado para disminuir las propiedades de refuerzo de los medicamentos / alimentos, restablecer / mejorar las propiedades gratificantes de los reforzadores naturales, inhibir las asociaciones aprendidas condicionadas, aumentar la motivación para actividades no relacionadas con los medicamentos / alimentos, disminuir la reactividad al estrés , mejorar el estado de ánimo y fortalecer el control inhibitorio de propósito general.
AGRADECIMIENTOS
Los autores desean agradecer el apoyo del programa intramural NIAAA de los Institutos Nacionales de Salud.
Referencias