COMMENTAIRES : Une étude réalisée par Nora Volkow, directrice de l’Institut national américain sur l’abus de drogues (NIDA), et son équipe. Cette étude recense les trois principaux dysfonctionnements neurobiologiques impliqués dans toutes les addictions. En résumé : a) la désensibilisation , soit une diminution de la sensation de plaisir due à une baisse de la signalisation dopaminergique ; b) la sensibilisation , soit une augmentation de la réponse dopaminergique aux stimuli, déclencheurs ou facteurs de stress associés à l’addiction ; et c) l’hypofrontalité , soit un affaiblissement des circuits de l’autocontrôle dû à une diminution du volume et du fonctionnement du cortex frontal. Ces mêmes modifications cérébrales ont été décrites par l’American Society for Addiction Medicine (ASAM) dans sa nouvelle définition de l’addiction, publiée en août 2011.
ND de Volkow, Wang GJ, JS Fowler, D Tomasi, F de Telang, Baler R. Bioessays. 2010 sep; 32 (9): 748-55.
Institut national sur l'abus des drogues, NIH, Bethesda, MD 20892, USA.
Abstract
Sur la base des résultats de l'imagerie cérébrale, nous présentons un modèle selon lequel la dépendance apparaît comme un déséquilibre dans le traitement de l'information et l'intégration entre divers circuits et fonctions cérébrales.
Les dysfonctionnements reflètent:
(a) sensibilité réduite des circuits de récompense,
(b) une sensibilité accrue des circuits de mémoire aux attentes conditionnées vis-à-vis des drogues et des signaux de drogue, de la réactivité au stress et de l'humeur négative,
(c) et un circuit de commande affaibli.
Bien que l'expérimentation initiale sur une drogue d'abus soit en grande partie un comportement volontaire, la poursuite de la consommation de drogue peut éventuellement altérer les circuits neuronaux cérébraux impliqués dans le libre arbitre, transformant la consommation de drogue en un comportement compulsif automatique. La capacité des drogues addictives à absorber les signaux de neurotransmetteurs entre neurones (notamment la dopamine, le glutamate et le GABA) modifie la fonction de différents circuits neuronaux, qui commencent à faiblir à différents stades de la trajectoire d’une dépendance. Lors de l'exposition au médicament, aux signaux de médicament ou au stress, il en résulte une hyperactivation illimitée du circuit de motivation / entraînement qui entraîne l'absorption compulsive de drogue qui caractérise la dépendance.
Introduction
Les dernières années de recherche en neuroscience menées par 25 ont montré que la toxicomanie était une maladie du cerveau et constituaient un argument puissant en faveur du maintien des mêmes normes de soins médicaux pour les toxicomanes que pour celles qui sont communes à d'autres maladies ayant un impact public majeur, comme Diabète. En effet, les recherches sur la toxicomanie ont commencé à mettre au jour la séquence d'événements et les séquelles durables pouvant résulter de l'abus persistant d'une substance provoquant une dépendance. Ces études ont montré comment une consommation répétée de drogues peut cibler des molécules clés et des circuits cérébraux, et éventuellement perturber les processus d'ordre supérieur qui sous-tendent les émotions, la cognition et le comportement. Nous avons appris que la dépendance se caractérise par un cycle de dysfonctionnement du cerveau en expansion. La déficience commence généralement dans les zones du cerveau évolutives plus primitives qui traitent la récompense, puis passe à d'autres zones responsables de fonctions cognitives plus complexes. Ainsi, en plus de récompenser, les toxicomanes peuvent subir de graves perturbations de l’apprentissage (mémoire, conditionnement, habituation), de la fonction exécutive (inhibition de l’impulsion, prise de décision, gratification différée), de la conscience cognitive (interception) et même émotionnelle (réactivité de l’humeur et du stress) les fonctions.
Partant largement des résultats d'études d'imagerie cérébrale utilisant la tomographie à émission de positons (TEP), nous présentons les principaux circuits cérébraux affectés par l'abus chronique de drogues, puis nous présentons un modèle cohérent selon lequel la dépendance apparaît comme le résultat net de traitement informatique déséquilibré dans et entre ces circuits. Une compréhension approfondie de ces processus cérébraux adaptatifs (neuroplastiques) graduels, ainsi que des facteurs de vulnérabilité biologique et environnementale qui influent sur leur probabilité, est essentielle pour la mise au point d'approches de prévention et de traitement plus efficaces pour lutter contre la toxicomanie.
Des poussées de dopamine élevées mais brèves sont nécessaires pour la dépendance
L'addiction est avant tout une maladie du système de récompense cérébral. Ce système utilise la dopamine (DA), un neurotransmetteur, comme principal vecteur d'information. La DA cérébrale joue un rôle clé dans le traitement de l'information relative à la saillance [ 1 , 2 ], ce qui est essentiel à sa capacité de réguler ou d'influencer la récompense [ 3 , 4 ], l'anticipation de la récompense [ 5 ], la motivation, les émotions et la sensation de plaisir. La libération transitoire de DA dans le striatum ventral est un événement nécessaire, mais non suffisant, dans les processus complexes qui engendrent la sensation de récompense : l'augmentation de la DA semble être positivement corrélée à l'intensité de l'effet euphorisant ressenti par les sujets. Les réponses conditionnées ne sont déclenchées que lorsque la DA est libérée de manière répétée sous forme de pics brefs et intenses, en réponse à la drogue ou à des stimuli associés à la drogue.
Il est intéressant de noter que, directement ou indirectement, toutes les drogues addictives agissent en déclenchant des augmentations importantes mais transitoires de la dopamine extracellulaire dans une région clé du système de récompense (limbique) [ 6 , 7 ], plus précisément dans le noyau accumbens (NAc) situé dans le striatum ventral. Ces pics de dopamine ressemblent, et dans certains cas surpassent largement, les augmentations physiologiques déclenchées par des stimuli naturellement agréables (généralement appelés renforçateurs naturels ou récompenses). Comme prévu, les études d'imagerie cérébrale chez l'humain, utilisant la tomographie par émission de positons (TEP), ont clairement montré que les augmentations de dopamine induites par différentes classes de drogues ( par exemple , les stimulants ( Fig. 1A ) [ 8 , 9 ], la nicotine [ 10 ] et l'alcool [ 11 ]) dans le striatum ventral sont liées à l'expérience subjective d'euphorie (ou d'ivresse) pendant l'intoxication [ 12 , 13 , 14 ]. Comme les études PET peuvent être réalisées chez des sujets humains éveillés, il est également possible d'établir la relation entre les effets subjectifs rapportés par les consommateurs de drogues et les variations relatives des taux de dopamine. La plupart des études ont montré que les personnes présentant les plus fortes augmentations de dopamine après l'exposition à des drogues [amphétamine, nicotine, alcool, méthylphénidate (MPH)] rapportent également l'effet euphorisant le plus intense ( Fig. 1B ).
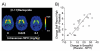
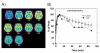
Des études animales et humaines ont démontré que la vitesse à laquelle une drogue pénètre dans le cerveau, y agit et l'élimine ( c'est-à -dire son profil pharmacocinétique) joue un rôle fondamental dans la détermination de ses effets de renforcement. En effet, toutes les drogues d'abus dont la pharmacocinétique cérébrale a été mesurée par TEP (cocaïne, méthylphénidate, méthamphétamine et nicotine) présentent le même profil lors d'une administration intraveineuse : les concentrations plasmatiques maximales dans le cerveau humain sont atteintes en moins de 10 minutes ( Fig. 2A ), et cette absorption rapide est associée à l'effet euphorisant ( Fig. 2B ). Partant de ce constat, il s'ensuit que ralentir au maximum la pénétration d'une drogue addictive dans le cerveau devrait être un moyen efficace de minimiser son potentiel de renforcement, et donc son potentiel d'abus. Nous avons conçu une expérience pour tester précisément cette hypothèse avec le stimulant méthylphénidate qui, comme la cocaïne, augmente la concentration de dopamine en ralentissant son transport vers le neurone présynaptique ( c'est- à-dire en bloquant les transporteurs de dopamine), amplifiant ainsi le signal dopaminergique. En effet, nous avons constaté que, si l'administration intraveineuse de MPH est souvent euphorisante, le MPH administré par voie orale, qui augmente également la dopamine dans le striatum [ 15 ] mais avec une pharmacocinétique 6 à 12 fois plus lente, n'est généralement pas perçu comme renforçateur [ 16 , 17 ]. Ainsi, l'incapacité du MPH oral – ou de l'amphétamine [ 18 ] d'ailleurs – à induire un effet euphorisant est probablement due à leur lente absorption par le cerveau [ 19 ]. Il est donc raisonnable de proposer l'existence d'une corrélation étroite entre la vitesse à laquelle une drogue pénètre dans le cerveau, qui détermine la vitesse d'augmentation de la dopamine dans le striatum ventral, et ses effets renforçateurs [ 20 , 21 , 22 ]. Autrement dit, pour qu'une drogue exerce des effets renforçateurs, elle doit augmenter brutalement la dopamine. Comment expliquer cela ?
Selon l'amplitude et la durée de l'activité neuronale, la signalisation dopaminergique (DA) peut prendre deux formes principales : phasique ou tonique. La signalisation phasique se caractérise par une forte amplitude et des salves brèves d'activité, tandis que la signalisation tonique présente généralement une faible amplitude et une durée plus prolongée. Cette distinction est importante car il s'avère que la signalisation DA phasique est nécessaire pour que les drogues induisent des « réponses conditionnées », l'une des premières neuroadaptations consécutives à l'exposition à des stimuli renforçateurs (dont une drogue). L'un des aspects distinctifs reliant la signalisation phasique au conditionnement est l'implication des récepteurs D2 et NMDA (acide N -méthyl- D -aspartique) du glutamate [ 23 ]. Par ailleurs, la signalisation DA tonique joue un rôle dans la modulation de la mémoire de travail et d'autres fonctions exécutives. Ce mode de signalisation se distingue notamment de la signalisation phasique par le fait qu'il opère principalement via les récepteurs DA de faible affinité (récepteurs D1). Cependant, et malgré les différents mécanismes impliqués, l'exposition prolongée aux drogues (et les changements dans la signalisation tonique de la DA à travers ces récepteurs) a également été impliquée dans les changements neuroplastiques qui aboutissent finalement au conditionnement [ 25 ] par la modification des récepteurs NMDA et alpha-amino-3-hydroxyl-5-méthyl-4-isoxazone-propionate (AMPA) du glutamate [ 24 ].
Les données indiquent que les augmentations brutales de la dopamine (DA) induites par la drogue imitent l'activité phasique des neurones dopaminergiques. Ceci contribue à expliquer pourquoi l'usage chronique d'une substance addictive peut engendrer des réponses conditionnées si puissantes à la drogue elle-même, à l'anticipation de sa consommation et à la multitude de stimuli (personnes, objets et lieux) associés à son usage. Cependant, si les effets de renforcement aigus des drogues d'abus, qui dépendent de ces augmentations rapides de la DA, sont probablement « nécessaires » au développement de la dépendance, ils ne sont clairement pas « suffisants ». L'exposition répétée à la drogue provoque des modifications de la fonction dopaminergique cérébrale qui mettent du temps à se développer, car elles résultent de neuroadaptations secondaires dans d'autres systèmes de neurotransmetteurs ( par exemple , le glutamate [ 26 ] et peut-être aussi l'acide γ-aminobutyrique (GABA)) qui, à terme, affectent d'autres circuits cérébraux modulés par la DA. Ces circuits seront abordés dans les sections suivantes.
L'abus de drogues chronique régule à la baisse les récepteurs de la dopamine et la production de dopamine: le «high» est émoussé
Le fait que la consommation de drogue doive devenir chronique avant que la dépendance ne s'installe indique clairement que, chez les individus vulnérables, la maladie repose sur des perturbations répétées du système de récompense. Ces perturbations peuvent à terme induire des neuroadaptations dans de nombreux autres circuits (motivation, contrôle inhibiteur/fonctions exécutives et mémoire/conditionnement) également modulés par la dopamine [ 27 ]. Parmi les neuroadaptations observées de manière constante chez les sujets dépendants figurent les réductions significatives des niveaux de récepteurs D2R (à haute affinité) et de la quantité de dopamine libérée par les neurones dopaminergiques [ 28 ] ( Fig. 3 ). Il est important de noter que ces déficits sont associés à une diminution de l'activité métabolique régionale dans des zones du cortex préfrontal (CPF) essentielles au bon fonctionnement des fonctions exécutives ( à savoir le gyrus cingulaire antérieur (GC) et le cortex orbitofrontal (COF)) ( Fig. 4A ). Cette observation nous a amenés à postuler que ce mécanisme pourrait être l'un des liens entre la perturbation de la signalisation dopaminergique induite par la drogue et l'administration compulsive de drogue, ainsi que le manque de contrôle sur la consommation qui caractérise l'addiction [ 29 ]. De plus, l'état hypodopaminergique qui en résulte expliquerait la diminution de la sensibilité aux récompenses naturelles (nourriture, sexe, etc.) chez les personnes dépendantes et la perpétuation de la consommation de drogue comme moyen de compenser temporairement ce déficit [ 30 ]. Un corollaire important de ces connaissances est que la correction de ces déficits (par l'augmentation des niveaux de récepteurs D2 striataux et de la libération de dopamine dans le striatum et les régions préfrontales) pourrait constituer une stratégie clinique pour atténuer l'impact de l'addiction [ 31 ]. Existe-t-il des preuves que la correction de l'état hypodopaminergique puisse avoir un impact positif sur les comportements liés à la toxicomanie ? La réponse est oui. Nos études montrent qu'en induisant une surproduction de récepteurs D2 au sein du système de récompense de rats ayant consommé de la cocaïne ou de l'alcool, nous pouvons réduire significativement l'auto-administration de ces substances [ 31 ] ou d'alcool [ 32 ]. De plus, chez les rongeurs, ainsi que chez les consommateurs de méthamphétamine [ 33 ], une diminution du taux de récepteurs D2 dans le striatum est également associée à l'impulsivité et, chez les rongeurs, elle prédit des comportements compulsifs d'auto-administration de drogue (voir ci-dessous).
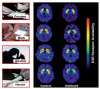
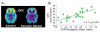
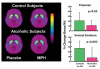
Des études d'imagerie ont également montré que, chez l'humain, la dépendance est associée à une diminution de la libération de dopamine dans le striatum ventral et d'autres régions de cette aire, ainsi qu'à une atténuation des sensations de plaisir induites par la drogue chez les consommateurs actifs et en sevrage ( Fig. 5 ) [ 34 ]. Ce résultat était inattendu, car on supposait jusqu'alors que la dépendance reflétait une sensibilité accrue aux effets gratifiants (et donc aux réponses dopaminergiques) des drogues. Chez les toxicomanes, la diminution de la libération de dopamine pourrait refléter soit une perturbation de la neurophysiologie au sein du circuit de la récompense ( c'est- à-dire au niveau des neurones dopaminergiques du striatum), soit une perturbation de la régulation par rétroaction de ce circuit par les voies préfrontales (contrôle exécutif) ou amygdaliennes (émotionnelles) (voies glutamatergiques préfrontales-striatales et amygdalo-striatales). Puisqu'un dysfonctionnement dopaminergique pur dans le striatum, tel qu'on l'observe chez le toxicomane chronique, ne permet pas d'expliquer les caractéristiques des comportements addictifs, comme l'impulsivité, les envies irrésistibles et la rechute déclenchée par les stimuli liés à la drogue, il est très probable que les régions préfrontales (ainsi que l'amygdale) soient également impliquées, car leur perturbation permettrait, ou du moins influencerait, ces caractéristiques comportementales.
Les niveaux réduits des récepteurs de la dopamine (DR2) empêchent le contrôle de l'impulsivité par le cortex préfrontal
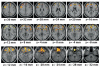
L'hypothèse selon laquelle la perte de contrôle des comportements compulsifs de consommation de drogue, caractéristique de la dépendance, pourrait être due en partie à des dysfonctionnements spécifiques des régions frontales du cerveau [ 35 ], a été formulée. De nombreuses données étayent désormais cette hypothèse, à commencer par des études animales explorant le lien entre les récepteurs D2 et le contrôle comportemental. Des expériences menées sur des rats montrent clairement une corrélation entre un faible taux de récepteurs D2 et l'impulsivité [ 36 ], ainsi qu'entre l'impulsivité et l'auto-administration de drogue [ 37 ]. Mais quel est ce lien ? Comme mentionné précédemment, chez les toxicomanes, un faible taux de récepteurs D2 striataux est significativement corrélé à un métabolisme cérébral du glucose réduit dans des régions clés du cortex préfrontal, telles que le cortex orbitofrontal (impliqué dans l'attribution de la saillance et dont le dysfonctionnement entraîne des comportements compulsifs) et le gyrus craniocervical (impliqué dans le contrôle inhibiteur et la surveillance des erreurs et dont le dysfonctionnement entraîne l'impulsivité) ( Fig. 4B ) [ 38 , 39 ]. De plus, dans une étude menée auprès d'individus (âge moyen ± écart-type : 24 ± 3 ans) ayant des antécédents familiaux d'alcoolisme, mais ne vivant avec aucun alcoolique, nous avons également mis en évidence une association significative entre le récepteur D2R striatal et le métabolisme dans les régions frontales (cortex cingulaire, cortex orbitofrontal et cortex préfrontal dorsolatéral) ainsi que dans l'insula antérieure (impliquée dans l'intéroception, la conscience de soi et le besoin impérieux de consommer de la drogue) [ 40 ] ( Fig. 6 ). Fait intéressant, ces individus présentaient un taux de récepteur D2R striatal plus élevé que les témoins appariés sans antécédents familiaux d'alcoolisme, bien qu'aucun changement de métabolisme frontal ne soit observé. Par ailleurs, chez les témoins, le récepteur D2R striatal n'était pas corrélé au métabolisme frontal. Ceci nous a amenés à formuler l'hypothèse que le taux de récepteur D2R striatal supérieur à la normale chez les sujets présentant un risque génétique élevé d'alcoolisme les protège en partie contre l'alcoolisme en renforçant l'activité des régions préfrontales. Combinées, ces données suggèrent que des niveaux élevés de D2R dans le striatum pourraient protéger contre la toxicomanie et la dépendance en maintenant les traits d'impulsivité sous contrôle, c'est -à-dire en régulant les circuits impliqués dans l'inhibition des réponses comportementales et dans le contrôle des émotions.
De même, nous avons émis l'hypothèse que les régions préfrontales sont également impliquées dans la réduction de la libération de dopamine striatale (et du renforcement) observée chez les sujets dépendants, car elles régulent l'activité des neurones dopaminergiques du mésencéphale et la libération de dopamine dans le striatum. Pour tester cette hypothèse, nous avons évalué la relation entre le métabolisme basal du cortex préfrontal et les augmentations de la dopamine striatale induites par l'administration intraveineuse de méthylphénidate (MPH) chez des sujets témoins et des alcooliques sevrés. Conformément à notre hypothèse, nous n'avons pas observé, chez les alcooliques, l'association normale entre le métabolisme préfrontal basal et la libération de dopamine dans le striatum, ce qui suggère que les diminutions marquées de la libération de dopamine dans le striatum observées chez les alcooliques reflètent en partie une régulation anormale de l'activité cérébrale par les régions préfrontales [ 34 ].
Ainsi, nous avons trouvé une association entre une activité de base réduite dans les PFC et une réduction de D2R striatale chez les sujets toxicomanes, et entre l’activité de base des PFC et la libération de DA chez les témoins non présente chez les toxicomanes. Ces associations démontrent les liens étroits entre les neuroadaptations dans les voies de PFC et les dysfonctionnements en aval dans le système de récompense et de motivation des DA, probablement en raison de l'influence du PFC sur l'impulsivité et la compulsivité. Cependant, ils ne tiennent pas compte de phénomènes comportementaux supplémentaires, tels que les effets des signaux associés à la drogue sur le déclenchement de l'état de manque, qui impliqueraient vraisemblablement de la mémoire et des circuits d'apprentissage.
Les souvenirs conditionnés et les comportements stéréotypés remplacent le «haut» comme moteur
La surstimulation des neurones dopaminergiques du striatum ventral finit par établir de nouvelles connexions fonctionnelles dans le cerveau entre l'acte de satisfaire le besoin et les événements situationnels qui l'entourent (environnement, routine de préparation de la drogue, etc.), créant ainsi de nouvelles associations apprises puissantes susceptibles de déclencher des comportements. À terme, le simple souvenir ou l'anticipation de la drogue peut déclencher les comportements impulsifs caractéristiques des personnes dépendantes. Avec la consommation répétée de drogue, l'activité des neurones dopaminergiques du striatum modifie la neurochimie sous-jacente à l'apprentissage associatif. Ceci facilite la consolidation des traces mnésiques inadaptées liées à la drogue, ce qui explique la capacité de divers stimuli associés à la drogue (dans l'attente apprise de recevoir la récompense liée à la drogue lors de l'exposition à ces stimuli) [ 41 ] à déclencher facilement l'activité des neurones dopaminergiques. Et compte tenu du rôle de la dopamine dans la motivation, ces augmentations de dopamine déclenchent la motivation nécessaire pour obtenir la récompense [ 42 ]. En effet, l'exposition répétée de rats à un stimulus neutre associé à la drogue (conditionnement) peut induire une augmentation de la dopamine et réactiver l'auto-administration de drogue [ 43 ]. Ces réponses conditionnées sont cliniquement pertinentes dans les troubles liés à l'usage de substances, car elles expliquent la forte probabilité de rechute chez une personne dépendante, même après de longues périodes de sevrage. Désormais, les techniques d'imagerie cérébrale permettent de tester si l'exposition humaine à des stimuli associés à la drogue peut déclencher un besoin impérieux de consommer, comme cela a été observé chez les animaux de laboratoire.
La consommation répétée de drogues modifie l'activité des neurones dopaminergiques du striatum, altérant ainsi la neurochimie sous-jacente à l'apprentissage associatif. Ceci facilite la consolidation des traces mnésiques inadaptées liées à la drogue, expliquant la capacité de divers stimuli associés à la drogue (dans l'attente apprise de recevoir la récompense liée à la drogue lors de l'exposition à ces stimuli) [ 41 ] à déclencher facilement l'activité des neurones dopaminergiques. Du fait du rôle de la dopamine dans la motivation, ces augmentations de dopamine stimulent la motivation nécessaire pour obtenir la récompense [ 42 ]. En effet, chez le rat, l'exposition répétée à un stimulus neutre associé à la drogue (conditionnement) peut induire une augmentation de la dopamine et rétablir l'auto-administration de drogue [ 43 ]. Ces réponses conditionnées sont cliniquement pertinentes dans les troubles liés à l'usage de substances, car elles sont responsables de la forte probabilité de rechute chez une personne dépendante, même après de longues périodes de sevrage. Désormais, les techniques d'imagerie cérébrale permettent de tester si l'exposition humaine à des stimuli associés à la drogue peut déclencher une envie irrésistible de consommer, comme cela a été observé chez les animaux de laboratoire.
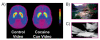
Cette question a été étudiée chez des consommateurs actifs de cocaïne. Deux études indépendantes, utilisant la TEP et le [ <sup>11</sup> C]raclopride, ont montré que l'exposition à une vidéo contenant des stimuli liés à la cocaïne (de sujets fumant de la cocaïne), mais pas à une vidéo neutre (de paysages naturels), augmentait la dopamine striatale chez les sujets humains dépendants à la cocaïne ( Fig. 7 ) et que ces augmentations de dopamine étaient associées à des déclarations subjectives de besoin impérieux de consommer la drogue [ 44 , 45 ]. Plus l'augmentation de dopamine induite par l'exposition à la vidéo contenant des stimuli liés à la cocaïne était importante, plus le besoin impérieux de consommer la drogue était intense. De plus, l'amplitude des augmentations de dopamine était également corrélée aux scores de gravité de la dépendance, soulignant l'importance des réponses conditionnées dans le syndrome clinique de la dépendance.
Il est important de souligner que, malgré la force présumée de ces associations inadaptées, de nouvelles données récentes suggèrent que les consommateurs de cocaïne conservent une certaine capacité à inhiber volontairement leurs envies. Par conséquent, les stratégies visant à renforcer la régulation fronto-striatale pourraient présenter des avantages thérapeutiques potentiels [ 46 ].
Mettre le tout ensemble
Certaines des caractéristiques les plus pernicieuses de la toxicomanie sont le besoin impérieux de prendre des drogues qui peuvent réapparaître même après des années d’abstinence et la capacité gravement compromise des toxicomanes d’empêcher la recherche de drogues une fois que l’état de manque surgit malgré des conséquences négatives bien connues.
Nous avons proposé un modèle de l'addiction [ 47 ] qui explique la nature multidimensionnelle de cette maladie en proposant un réseau de quatre circuits interdépendants. Le dysfonctionnement combiné de ces circuits peut expliquer de nombreux comportements stéréotypés de l'addiction : (a) la récompense, impliquant plusieurs noyaux des ganglions de la base, notamment le striatum ventral, dont le noyau accumbens reçoit des afférences de l'aire tegmentale ventrale et relaie l'information au pallidum ventral ; (b) la motivation, localisée dans le cortex orbitofrontal, le cortex subcalleux, le striatum dorsal et le cortex moteur ; (c) la mémoire et l'apprentissage, localisés dans l'amygdale et l'hippocampe ; et (d) la planification et le contrôle, localisés dans le cortex préfrontal dorsolatéral, le gyrus cingulaire antérieur et le cortex frontal inférieur. Ces quatre circuits reçoivent une innervation directe des neurones dopaminergiques, mais sont également connectés entre eux par des projections directes ou indirectes (principalement glutamatergiques).
Les quatre circuits de ce modèle fonctionnent de concert et leur fonctionnement évolue avec l'expérience. Chacun est associé à un concept important : la saillance (récompense), l'état interne (motivation), les associations apprises (mémoire, conditionnement) et la résolution des conflits (contrôle). De plus, ces circuits interagissent avec ceux impliqués dans l'humeur (notamment la réactivité au stress) [ 48 ] et avec l'intéroception (qui induit la conscience du besoin impérieux de drogue et de l'humeur) [ 49 ]. Nous avons proposé que le schéma d'activité du réseau à quatre circuits décrit ici influence la manière dont un individu fait des choix parmi plusieurs alternatives. Ces choix sont influencés systématiquement par les circuits de la récompense, de la mémoire/du conditionnement, de la motivation et du contrôle, eux-mêmes modulés par les circuits sous-jacents à l'humeur et à la conscience ( Fig. 8A ).
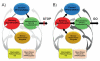
La réponse à un stimulus est influencée par sa saillance momentanée, c'est-à-dire par la récompense attendue. Cette attente de récompense est traitée en partie par les neurones dopaminergiques projetant vers le striatum ventral et influencée par les projections glutamatergiques du cortex orbitofrontal (qui attribue une valeur de saillance en fonction du contexte) et de l'amygdale/hippocampe (qui interviennent dans les réponses conditionnées et la remémoration). La valeur du stimulus est pondérée (comparée) à celle d'autres stimuli alternatifs, mais varie également en fonction des besoins internes de l'individu, modulés par l'humeur (notamment la réactivité au stress) et la conscience interoceptive. En particulier, l'exposition au stress augmente la saillance des drogues tout en diminuant la régulation préfrontale de l'amygdale [ 50 ]. De plus, l'exposition chronique aux drogues étant liée à une sensibilisation accrue aux réponses au stress, cela explique pourquoi le stress peut si souvent déclencher une rechute en situation clinique. Plus la valeur saillante du stimulus est forte, en partie façonnée par des expériences mémorisées antérieurement, plus l'activation du circuit motivationnel est importante et plus la pulsion à l'obtenir est forte. La décision cognitive d'agir (ou non) pour obtenir le stimulus est traitée en partie par le cortex préfrontal (PFC) et le gyrus craniocervical (CG), qui évaluent le rapport entre les conséquences positives immédiates et les conséquences négatives différées, et par le cortex frontal inférieur (aire de Brodmann 44), qui inhibe la réponse prépotente à l'action [ 51 ].
Selon ce modèle, chez le sujet dépendant ( Fig. 8B ), la saillance de la drogue et des indices qui lui sont associés est accrue au détriment d'autres récompenses (naturelles), dont la saillance est nettement réduite. Ceci expliquerait la motivation accrue à rechercher la drogue. Cependant, une exposition aiguë à la drogue réinitialise également les seuils de récompense, entraînant une diminution de la sensibilité du circuit de la récompense aux renforçateurs [ 52 ], ce qui contribue également à expliquer la diminution de la valeur des renforçateurs non liés à la drogue chez le dépendant. Une autre raison de la saillance accrue d'une drogue est l'absence d'habituation des réponses dopaminergiques aux drogues (tolérance), contrairement à l'habituation normale qui existe pour les récompenses naturelles et qui conduit à la satiété [ 53 ].
De plus, l'exposition à des stimuli conditionnés suffit à augmenter les seuils de récompense [ 54 ] ; par conséquent, nous prévoyons que chez une personne dépendante, l'exposition à un environnement comportant des signaux conditionnés exacerberait davantage sa sensibilité diminuée aux récompenses naturelles. En l'absence de concurrence d'autres renforçateurs, l'apprentissage conditionné érige l'acquisition de la drogue en motivation principale pour l'individu. Nous formulons l'hypothèse que les signaux associés à la drogue (ou le stress) entraînent des augmentations rapides de la dopamine dans le noyau accumbens (NAc) du striatum ventral et du striatum dorsal, ce qui alimente la motivation à consommer la drogue et ne peut être efficacement contré par un cortex préfrontal (CPF) dysfonctionnel. Ainsi, lors de la consommation de drogue et de l'intoxication, l'amplification des signaux dopaminergiques entraînerait une suractivation correspondante des circuits de la motivation et de la mémoire, ce qui désactiverait le CPF (l'inhibition préfrontale s'accompagnant d'une forte activation de l'amygdale) [ 50 ], bloquant ainsi la capacité du CPF à contrôler le circuit de la motivation. En l'absence de ce contrôle inhibiteur, un cercle vicieux se met en place, entraînant une consommation compulsive de drogue. Les interactions entre les circuits étant bidirectionnelles, l'activation du réseau lors de l'intoxication renforce la valeur saillante de la drogue et le conditionnement aux stimuli associés.
Conclusions
En résumé, nous proposons un modèle expliquant l'addiction comme suit : lors d'une addiction, la valeur accrue des signaux associés à la drogue dans le circuit de la mémoire renforce l'anticipation de la récompense et la motivation à consommer la drogue, en neutralisant le contrôle inhibiteur exercé par un cortex préfrontal (CPF) déjà dysfonctionnel. Bien que l'augmentation de la dopamine (DA) induite par la drogue soit fortement atténuée chez les sujets dépendants, les effets pharmacologiques de la drogue deviennent des réponses conditionnées en soi, renforçant encore la motivation à consommer et favorisant un cercle vicieux désormais sans opposition, du fait de la déconnexion du circuit de contrôle préfrontal. Parallèlement, l'addiction est susceptible de recalibrer les circuits qui régissent l'humeur et la conscience (représentés par des nuances de gris plus foncées) ( Fig. 8B ), ce qui, si cela était corroboré expérimentalement, accentuerait le déséquilibre au détriment du contrôle inhibiteur et favoriserait le besoin impérieux et la consommation compulsive de drogue.
Nous admettons volontiers qu’il s’agit d’un modèle simplifié: nous nous rendons compte que d’autres régions du cerveau doivent également être impliquées dans ces circuits, qu’une région peut contribuer à plusieurs circuits et que d’autres circuits sont également impliqués dans une dépendance. De plus, bien que ce modèle se concentre sur la DA, il ressort des études précliniques que les modifications des projections glutamatergiques sont à l’origine de nombreuses adaptations observées dans le domaine de la toxicomanie et que nous avons discutées ici. Des études précliniques ont également montré que d’autres neurotransmetteurs sont impliqués dans le renforcement des effets de médicaments comme les cannabinoïdes et les opioïdes. Malheureusement, jusqu'à récemment, l'accès limité aux traceurs radio pour l'imagerie TEP avait limité la capacité à enquêter sur l'implication d'autres neurotransmetteurs dans la récompense du médicament et dans la dépendance.
Abréviations
- AMPA
- α-amino-3-hydroxyle-5-méthyl-4-isoxazole-propionate
- CG
- gyrus cingulé
- CTX
- cortex
- D2R
- récepteurs de type dopamine 2 / 3
- DA
- dopamine
- FDG
- fluorodésoxyglucose
- GABA
- acide γ-aminobutyirique
- HPA
- axe hypothalamique hypophysaire
- MPH
- méthylphénidate
- Nac
- noyau accumbens
- NMDA
- n-méthyl-d-l'acide aspartique
- OFC
- cortex orbitofrontal
- ANIMAUX
- tomographie par émission de positrons
- PFC
- cortex préfrontal
- VP
- pallidum ventral
Références
55. Fowler JS, Volkow ND, Logan J, et al. Absorption rapide et liaison prolongée de la méthamphétamine dans le cerveau humain : comparaison avec la cocaïne. Neuroimage. 2008 ; 43 :756-63. [ Article gratuit PMC ] [ PubMed ]