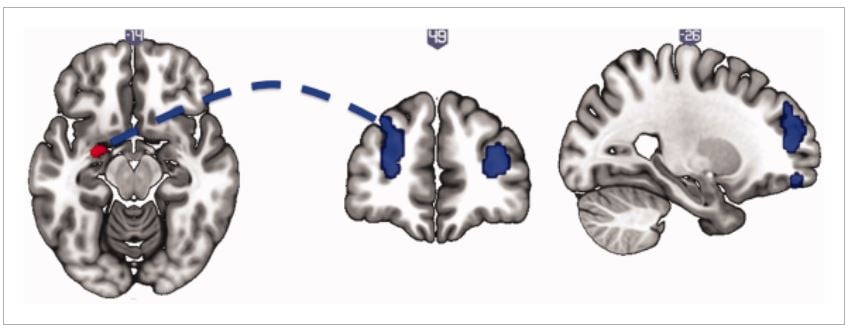
COMMENTAIRES : Bien que l’étude utilise le terme « comportement sexuel compulsif (CSC) », les sujets étaient des personnes dépendantes à la pornographie ( voir ce communiqué de presse ). Comparés aux sujets témoins sains, les sujets présentant un CSC avaient un volume accru de l’amygdale gauche et une connectivité fonctionnelle réduite au repos entre l’amygdale gauche et le cortex préfrontal dorsolatéral bilatéral (DLPFC). Les auteurs concluent :
Nos résultats actuels mettent en évidence des volumes élevés dans une région impliquée dans la saillance motivationnelle et une connectivité inférieure au repos des réseaux de contrôle réglementaire préfrontal descendants. La perturbation de tels réseaux peut expliquer les schémas comportementaux aberrants qui favorisent une récompense environnementale ou une réactivité accrue aux signaux incitatifs saillants. Bien que nos résultats volumétriques contrastent avec ceux des troubles liés à l'utilisation de substances, ces résultats peuvent refléter des différences en fonction des effets neurotoxiques de l'exposition chronique à un médicament.
Résultat de traduction n° 1 : « Connectivité fonctionnelle réduite entre l’amygdale et le cortex préfrontal dorsolatéral. » L’amygdale joue un rôle clé dans le traitement des émotions, notamment notre réponse au stress. Elle est fortement impliquée dans de nombreux aspects de la dépendance, tels que les envies irrésistibles, la réactivité aux stimuli et les symptômes de sevrage. Une connectivité fonctionnelle réduite entre l’amygdale et le cortex préfrontal est corrélée aux dépendances aux substances. On pense qu’une connectivité plus faible diminue le contrôle exercé par le cortex préfrontal sur l’impulsion de l’usager à adopter le comportement addictif.
Résultat de traduction n° 2 : « Augmentation du volume de l’amygdale » (ce qui signifie une plus grande quantité de matière grise). La plupart des études sur la toxicomanie font état d’une amygdale plus petite chez les toxicomanes (moins de matière grise). Cette étude suggère que la toxicité des drogues pourrait entraîner une diminution de la matière grise et, par conséquent, une réduction du volume de l’amygdale chez les toxicomanes. Cela joue sans aucun doute un rôle. Il convient de noter que l’amygdale est constamment active lors du visionnage de pornographie, en particulier lors de la première exposition à un stimulus sexuel. Par exemple, le fait de passer d’un onglet à l’autre ou de rechercher une vidéo ou une image active l’amygdale. Il est possible que la nouveauté sexuelle constante et la recherche compulsive aient un effet particulier sur l’amygdale chez les consommateurs compulsifs de pornographie.
Autre explication possible du volume accru de l'amygdale chez les personnes dépendantes à la pornographie : des années de consommation compulsive de pornographie peuvent certainement constituer un facteur de stress. De plus, ces sujets de l'étude CSB n'étaient pas seulement dépendants à la pornographie ; ils subissaient également de graves conséquences négatives liées à cette consommation (perte d'emploi, problèmes relationnels, apparition de troubles de l'érection induits par la pornographie). Un point essentiel : le stress social chronique est associé à une augmentation du volume de l'amygdale.
Bien que les mécanismes précis de la plasticité ne soient pas encore pleinement compris, un stress modéré à sévère semble augmenter la croissance de plusieurs secteurs de l'amygdale , tandis que les effets sur l'hippocampe et le cortex préfrontal tendent à être opposés.
Nous examinons ce résultat à la lumière d'une étude de 2015 qui a révélé que les personnes souffrant d'addiction sexuelle présentent une hyperactivité de l'axe hypothalamo-hypophyso-surrénalien (HPA), signe d'une réponse excessive au stress. Le stress chronique lié à la dépendance à la pornographie et au sexe, combiné aux facteurs propres à la sexualité, pourrait-il entraîner une augmentation du volume de l'amygdale ? Enfin, un volume réduit de l'amygdale pourrait être un facteur préexistant chez les personnes alcooliques, car les enfants issus de familles à haut risque d'alcoolisme présentent généralement une amygdale plus petite.
LIEN VERS L'ÉTUDE COMPLETE
Casper Schmidt, 1,2,3 Laurel S. Morris, 1,4 Timo L. Kvamme, 1,2,3 Paula Hall, 5 Thaddeus Birchard, 5 et Valerie Voon 1,4,6*
Cartographie du cerveau humain
- Première publication: 27 October 2016 Historique complet de la publication
- DOI: 10.1002 / hbm.23447 Voir / sauvegarder la citation
Les auteurs déclarent ne pas avoir de conflit d'intérêts à déclarer.
Abstract
Présentation
Les comportements sexuels compulsifs (CSB) sont relativement courants et associés à un dysfonctionnement personnel et social important. La neurobiologie sous-jacente est encore mal comprise. La présente étude examine les volumes du cerveau et la connectivité fonctionnelle au repos dans le CSB par rapport aux volontaires sains appariés (HV).
Méthodologie
Les données d'IRM structurelle (MPRAGE) ont été collectées chez des sujets 92 (hommes 23 CSB et HV de 69 mâle apparié), et analysées à l'aide d'une morphométrie à base de voxel. Des données d'IRM fonctionnelles à l'état de repos utilisant une séquence multi-écho planaire et une analyse en composantes indépendantes (ME-ICA) ont été recueillies chez des sujets 68 (sujets 23 CSB et HV 45 appariée à l'âge).
Résultats
Les sujets CSB ont montré des volumes de matière grise de l'amygdale gauche plus importants (corrigé pour les petits volumes, ajusté par Bonferroni P < 0.01) et une connectivité fonctionnelle au repos réduite entre la graine de l'amygdale gauche et le cortex préfrontal dorsolatéral bilatéral (cerveau entier, corrigé par cluster FWE P < 0.05) par rapport au HV.
Conclusions
La CSB est associée à des volumes élevés dans les régions limbiques en rapport avec le traitement de la motivation motivationnelle et des émotions et à une connectivité fonctionnelle altérée entre les régions régulatrices du contrôle préfrontal et les régions limbiques. Les futures études devraient viser à évaluer les mesures longitudinales pour déterminer si ces résultats sont des facteurs de risque antérieurs à l’apparition de comportements ou des conséquences de ces comportements.
Abréviations
- Cortex cingulaire antérieur ACC
- Comportement sexuel compulsif CSB
- LCR liquide céphalo-rachidien
- Cortex préfrontal dorsolatéral DLPFC
- Matière grise GM
- Modèle linéaire général GLM
- HV volontaires sains
- MPRAGE magnétisation préparée gradient-écho
- Cortex orbitofrontal OFC
- ROI région d'intérêt
- Cartographie paramétrique statistique SPM
- Temps de répétition TR
- TE echo time
- Morphométrie VBM à base de voxels
- WM substance blanche.
INTRODUCTION
Le comportement sexuel compulsif (CSC), également appelé hypersexualité ou addiction sexuelle, est relativement fréquent (estimé entre 3 % et 6 %) [Kraus et al., 2016 ] et est associé à une souffrance importante et à des répercussions psychosociales significatives. Il se caractérise notamment par des envies irrésistibles, une impulsivité et des difficultés d'insertion sociale et professionnelle [Kraus et al., 2016 ]. Des études récentes se sont concentrées sur la compréhension des corrélats neurobiologiques sous-jacents [Kraus et al., 2016 ], mais le nombre limité d'études restreint notre compréhension des mécanismes sous-jacents et la manière dont nous pourrions conceptualiser ces troubles. Le CSC a été conceptualisé soit comme un trouble du contrôle des impulsions, soit comme une addiction comportementale [Kraus et al., 2016 ]. Cependant, bien que des critères pour l'hypersexualité aient été proposés pour le DSM-5 et validés lors d'une étude pilote [Reid et al., 2012 ], ce trouble, ainsi que l'usage pathologique d'Internet ou des jeux vidéo, n'ont pas été inclus dans la partie principale du DSM-5, notamment en raison du manque de données sur ces affections. Des études complémentaires sur les comportements sexuels à risque (CSR) sont donc nécessaires pour mieux comprendre ces troubles. Bien que les CSR puissent se manifester par divers comportements, nous nous concentrons ici sur un groupe rapportant des difficultés prédominantes liées à une consommation compulsive de pornographie. Nous utilisons le terme CSR en partant du principe que le terme « compulsif » décrit la phénoménologie répétitive et n'implique aucune hypothèse mécanistique ou étiologique.
Nous avons réalisé une revue de la littérature sur les addictions comportementales utilisant la morphométrie basée sur les voxels (MBV) ou l'épaisseur corticale. Nous avons utilisé les mots-clés suivants sur PubMed ( http://www.ncbi.nlm.nih.gov/pubmed ) : « [(« morphométrie basée sur les voxels » ou « épaisseur corticale ») et] », suivis de « [jeu pathologique] », « [dépendance à Internet] », « [trouble lié à Internet] », « », ou « [dépendance aux jeux vidéo] ». Au total, 13 études portant sur les addictions comportementales liées aux jeux de hasard, à l'utilisation d'Internet ou aux jeux vidéo ont été recensées, évaluant soit la MBV, soit l'épaisseur corticale. Cette revue de la littérature est présentée dans le tableau 1 et discutée ci-dessous.
Tableau 1. Revue de la littérature des études volumétriques et d'épaisseur corticale sur les dépendances comportementales
|
Objet |
Addiction comportementale |
Sujets (P / HV) |
Mesurer |
Régions impliquées |
|---|---|---|---|---|
|
||||
| [Grant et al., 2015] | Trouble du jeu | 16/17 | Épaisseur corticale | Diminution de l'épaisseur corticale dans r-SFC, RMFC, MOFC, PCG et bl-IPC |
| [Joutsa et al., 2011] | Jeu pathologique | 12/12 | Morphométrie à base de voxel | Pas de différences volumétriques entre GM et MW entre HV et les patients |
| [Koehler et al., 2013] | Jeu pathologique | 20/21 | Morphométrie à base de voxel | Augmentation du volume GM dans bl-VS et r-PFC |
| [van Holst et al., 2012] | Problème de jeu | 40/54 | Morphométrie à base de voxel | Pas de différences volumétriques entre GM et WM entre joueurs problématiques et HV |
| [Hong et al., 2013] | addiction à Internet | 15/15 | Épaisseur corticale | Diminution de l'épaisseur corticale dans r-LOFC |
| [Yuan et al., 2011] | addiction à Internet | 18/18 | Morphométrie à base de voxel | Diminution du volume GM en DLPFC, SMA, OFC, CB, RACC |
| [Zhou et al., 2011] | addiction à Internet | 15/18 | Morphométrie à base de voxel | Diminution de la densité GM en l-ACC, PCC, IC, LING |
| [Lin et al., 2014] | Dépendance au jeu sur Internet | 35/36 | Morphométrie à base de voxel | Diminution de la densité GM dans les IFG, l-CG, IC et r-HIPP
Diminution de la densité de WM dans IFG, IC, IPC, ACC |
| [Sun et al., 2014] | Dépendance au jeu sur Internet | 18/21 | Morphométrie à base de voxel | Augmentation du volume de GM dans les r-ITG, MTG, PHG
Diminution du volume GM dans le l-PrCG |
| [Wang et al., 2015] | Trouble du jeu sur Internet | 28/28 | Morphométrie à base de voxel | Diminution du volume GM dans ACC, PCUN, SMA, SPC et l-DLPFC, IC, CB |
| [Cai et al., 2015] | Trouble du jeu sur Internet | 27/30 | Volume sous-cortical, FreeSurfer | Augmentation des volumes de CN et de VS |
| [Weng et al., 2013] | Dépendance au jeu en ligne | 17/17 | Morphométrie à base de voxel | Diminution du volume GM dans r-OFC, SMA et bl-IC |
| [Yuan et al., 2013] | Dépendance au jeu en ligne | 18/18 | Épaisseur corticale | Augmentation de l'épaisseur corticale dans les l-PrCG, PCUN, MFC, ITG, MTG
Diminution de l'épaisseur corticale en l-LOFC, IC, r-PCG, IPC |
Les études sur les troubles liés à l'usage de substances (TUS) permettent de mieux comprendre les perturbations neuronales associées aux addictions. Les personnes souffrant de TUS présentent une diminution du volume et de l'épaisseur du cortex cérébral, notamment dans les régions préfrontales impliquées dans le contrôle comportemental flexible. Une méta-analyse récente portant sur 9 études et 296 personnes dépendantes à l'alcool a mis en évidence une réduction significative du volume de la matière grise préfrontale, y compris du cortex cingulaire antérieur (CCA) [Xiao et al., 2015 ], le volume de la matière grise corticale frontale étant inversement corrélé à la consommation d'alcool au cours de la vie [Taki et al., 2006 ]. Le volume de la matière grise préfrontale était également réduit chez les personnes dépendantes à la cocaïne, notamment dans le cortex orbitofrontal (COF) [Rando et al., 2013 ]. Tanabe et al., 2009 ], le cortex préfrontal antérieur [Rando et al., 2013 ] et l'ACC [Connolly et al., 2013 ], ce dernier étant associé à des années de consommation de drogue [Connolly et al., 2013 ].
Les différences de groupe dans les volumes corticaux et l’épaisseur ont été moins nettes dans les dépendances comportementales (voir tableau). 1). Trois petites études sur le trouble du jeu ont révélé des résultats incohérents, qu’il s’agisse d’une diminution de l’épaisseur de la corticale dans plusieurs régions préfrontales et pariétales [Grant et al. 2015], augmentation des volumes dans le cortex préfrontal droit [Koehler et al., 2013] ou pas de différences de groupe [Joutsa et al., 2011]. Dans une vaste étude de joueurs problématiques moins graves, aucune différence de groupe n'a été observée dans les volumes cérébraux [van Holst et al. 2012]. Une petite étude sur la dépendance à Internet a montré une épaisseur corticale inférieure dans l’OFC [Hong et al., 2013], avec un autre volume rapporté dans le cortex préfrontal dorsolatéral (DLPFC) [Yuan et al., 2011] et deux études suggérant des volumes plus faibles d’ACC [Yuan et al., 2011; Zhou et al., 2011]. Deux petites études sur les troubles du jeu sur Internet ont révélé une diminution des volumes dans les centres de traitement de la drogue [Weng et al., 2013; Yuan et al., 2013], et deux grandes études ont rapporté des volumes plus faibles dans le cortex cingulaire [Lin et al., 2014; Wang et al., 2015] avec des études uniques rapportant une diminution du DLPFC [Wang et al., 2015], frontal inférieur [Lin et al., 2014], pariétal supérieur [Wang et al., 2015] et pariétal inférieur [Yuan et al., 2013] cortices. En ce qui concerne les structures sous-corticales, une petite étude a rapporté des volumes plus élevés de striatales ventrales (VS) dans les troubles du jeu [Koehler et al. 2013] sans différences sous-corticales rapportées dans les autres études. Dans les troubles du jeu sur Internet, les résultats étaient également incompatibles avec le parahippocampe plus grand [Sun et al., 2014], hippocampe inférieur [Lin et al., 2014] ou pas de différences [Wang et al., 2015; Weng et al., 2013]. Une étude avec une taille d'échantillon raisonnable axée sur les volumes sous-corticaux a rapporté des volumes plus importants de caudés et de VS associés à des déficits de contrôle cognitif [Cai et al. 2015]. Pris ensemble, les résultats des anomalies corticales ou sous-corticales dans le trouble du jeu sont très contradictoires. En revanche, les anomalies corticales signalées dans l'utilisation d'Internet ou les jeux sur Internet signalent plus régulièrement des volumes réduits, avec une diminution du volume de l'ACC et de l'OFC répliqués dans au moins deux études.
À ce jour, les preuves de modifications neuronales structurelles chez les personnes souffrant de dépendance sexuelle à la pornographie (DSP) sont rares. Des études menées auprès de personnes saines consommant de la pornographie de manière excessive, sans diagnostic de DSP, montrent une diminution du volume de substance grise dans le noyau caudé droit [Kühn et Gallinat, 2014 ]. Une petite étude d'IRM de diffusion réalisée chez des personnes souffrant de DSP ( n = 8 par groupe) a révélé une réduction de la diffusivité moyenne dans les faisceaux de substance blanche frontaux supérieurs par rapport aux sujets témoins [Miner et al., 2009 ]. Concernant l'activité fonctionnelle, les hommes témoins présentent des processus d'habituation accrus, avec une activité BOLD putaminale gauche plus faible en réponse à des images érotiques statiques [Kühn et Gallinat, 2014 ] et un potentiel positif tardif plus faible en réponse à des images explicites [Prause et al., 2015 ]. En revanche, dans une étude d'IRMf réalisée lors d'une tâche, comparant les personnes souffrant de DSP aux sujets témoins, les vidéos sexuelles explicites ont induit des réponses BOLD plus importantes au niveau du striatum ventral (SV), de l'amygdale et du cortex cingulaire antérieur dorsal (CCA dorsal) chez les personnes souffrant de DSP [Voon et al., 2014 ]. La connectivité fonctionnelle entre ces régions était corrélée à un indice de désir sexuel, ou de « désir », mais pas à un « plaisir » chez les sujets présentant un comportement sexuel compulsif (CSB), suggérant le rôle de la motivation incitative, à l’instar de la dépendance aux substances. De même, dans une autre étude sur la dépendance à la pornographie sur Internet, l’image sexuelle préférée était associée à une activité striatale ventrale plus importante et corrélée uniquement aux symptômes auto-déclarés de dépendance à la pornographie sur Internet, et non à d’autres mesures du comportement sexuel ou de la dépression [Brand et al., 2016 ]. Une autre étude récente montre également que les individus présentant un comportement hypersexuel problématique éprouvaient un désir sexuel plus fréquent et plus intense lors de l’exposition à des stimuli sexuels, et qu’une activation plus importante était observée dans le noyau caudé, le lobe pariétal inférieur, le gyrus cingulaire antérieur dorsal, le thalamus et le cortex préfrontal dorsolatéral (DLPFC) dans ce groupe [Seok et Sohn, 2015 ]. Les individus présentant un CSB montrent en outre un biais attentionnel précoce plus important envers les stimuli sexuels explicites [Mechelmans et al., 2014 ], qui était corrélé aux préférences de choix pour les indices conditionnés par des images sexuelles [Banca et al., 2016 ]. En réponse à une exposition répétée à des images érotiques statiques, les sujets CSB ont montré une plus grande habituation dans le cortex cingulaire antérieur dorsal aux résultats sexuels, ce qui était corrélé aux préférences de choix pour de nouvelles images sexuelles [Banca et al., 2016 ], un effet qui peut s'expliquer par l'habituation mais qui pourrait également être cohérent avec le concept de tolérance dans les addictions.
La présente étude examine le volume de matière grise chez les personnes souffrant de comportements sexuels à risque (CSB) et passe en revue la littérature actuelle sur les études volumétriques et d'épaisseur corticale dans le trouble du jeu pathologique et les troubles liés à l'utilisation d'Internet et des jeux vidéo. Nous examinons également la connectivité fonctionnelle au repos d'individus atteints de CSB et d'un groupe témoin sain apparié, à l'aide d'une nouvelle séquence planaire multi-écho et d'une analyse en composantes indépendantes (ME-ICA). Dans cette méthode, les signaux BOLD sont identifiés comme des composantes indépendantes présentant une variation linéaire du signal en fonction du temps d'écho (TE), tandis que les signaux non-BOLD sont identifiés comme des composantes indépendantes du TE [Kundu et al., 2012 ]. Nous anticipons une perturbation du réseau des systèmes de saillance et de récompense, sous-tendu par l'amygdale, le striatum ventral (VS) et le cortex cingulaire antérieur dorsal (ACCd).
MÉTHODES
Participants
Les sujets de l'étude CSB ont été recrutés par le biais d'annonces sur Internet et par recommandation de thérapeutes. Les sujets témoins masculins, appariés en âge, ont été recrutés par le biais d'annonces communautaires dans la région d'East Anglia. Tous les sujets présentant un comportement sexuel compulsif (CSC) ont été interrogés par un psychiatre afin de confirmer qu'ils répondaient aux critères diagnostiques du CSC (critères diagnostiques proposés pour l'hypersexualité [Kafka, 2010 ; Reid et al., 2012 ] et l'addiction sexuelle [Carnes et al., 2007 ]), en particulier à l'utilisation compulsive de contenus sexuellement explicites en ligne. Cette utilisation a été évaluée à l'aide d'une version modifiée de l'échelle des expériences sexuelles de l'Arizona (ASES) [Mcgahuey et al., 2011 ], où les questions étaient notées de 1 à 8, les scores les plus élevés indiquant une plus grande altération subjective. Compte tenu de la nature des stimuli, tous les sujets CSC et les témoins sains étaient des hommes hétérosexuels. Tous les témoins sains étaient appariés en âge (à ± 5 ans près) aux sujets CSC. La compatibilité des sujets avec l'environnement IRM a également été vérifiée, comme nous l'avons fait précédemment [Banca et al., 2016 ; Mechelmans et al., 2014 ; Voon et al., 2016]. 2014 ]. Les critères d'exclusion comprenaient l'âge inférieur à 18 ans, des antécédents de troubles liés à l'usage de substances, une consommation régulière actuelle de substances illicites (y compris le cannabis) et un trouble psychiatrique grave, notamment une dépression majeure modérée à sévère ou un trouble obsessionnel-compulsif, ou des antécédents de trouble bipolaire ou de schizophrénie (dépistés à l'aide du Mini International Neuropsychiatric Inventory) [Sheehan et al., 1998 ]. Les autres addictions compulsives ou comportementales constituaient également des critères d'exclusion. Les participants ont été évalués par un psychiatre concernant l'utilisation problématique des jeux en ligne ou des médias sociaux, le jeu pathologique ou les achats compulsifs, le trouble déficitaire de l'attention avec hyperactivité (TDAH) chez l'enfant ou l'adulte, et le diagnostic de trouble de l'hyperphagie boulimique. Les participants ont rempli l'échelle UPPS-P (Impulsive Behavior Scale) [Whiteside et Lynam, 2001 ] pour évaluer l'impulsivité et l'inventaire de dépression de Beck [Beck et al., 1961 ] pour évaluer la dépression. Deux des 23 participants présentant un trouble du comportement alimentaire (TCA) ont été exclus de l'étude. Les participants prenaient des antidépresseurs ou présentaient une comorbidité de trouble d'anxiété généralisée et de phobie sociale ( N = 2), ou une phobie sociale seule ( N = 1), ou encore des antécédents d'hyperactivité avec déficit de l'attention (TDAH) durant l'enfance ( N = 1). Un consentement éclairé écrit a été obtenu et l'étude a été approuvée par le Comité d'éthique de la recherche de l'Université de Cambridge. Les participants ont été rémunérés pour leur participation.
Neuroimagerie
Acquisition et traitement de données
De construction.
Des images structurelles ont été collectées, notamment un écho de gradient préparé par magnétisation complète (MPRAGE) à l’aide d’un scanner Siemens Tim Trio 3T avec bobine de tête 32 utilisant une séquence MPRAGE pondérée T1 (tranches sagittales 176, balayages minute 9; temps de répétition (TR) = 2,500 ms; temps d'écho (TE) = 4.77 ms; temps d'inversion = 1,100 ms; matrice d'acquisition = 256 × 256 × 176; angle de retournement = 7 °; taille du voxel 1 × 1 × 1 mm). La numérisation a eu lieu au Wolfson Brain Imaging Center de l’Université de Cambridge.
Les données structurelles ont été traitées avec le logiciel SPM8 (Statistical Parametric Mapping ; http://www.fil.ion.ucl.ac.uk/spm ) (Wellcome Trust Centre for Neuroimaging, Londres, Royaume-Uni). Les images anatomiques ont été réorientées manuellement, l'origine étant placée au niveau de la commissure antérieure. Les images ont été segmentées (à l'aide de la fonction « New Segment » de SPM) en substance grise (SG), substance blanche (SB) et liquide céphalo-rachidien (LCR) selon les cartes de probabilité tissulaire standard pour chaque type de tissu. Les volumes des trois classes de tissus ont été additionnés pour obtenir une estimation du volume intracrânien total. Un modèle personnalisé a été créé à l'aide de DARTEL [Ashburner, 2007 ], qui définit les paramètres nécessaires pour ajuster de manière itérative l'image native de SG de chaque individu à un espace commun. Ce modèle DARTEL a ensuite été enregistré sur les cartes de probabilité tissulaire par transformations affines, ramenant les images dans l'espace MNI. Les images ont été lissées spatialement avec un noyau de largeur à mi-hauteur (FWHM) de 8 mm³.
État de repos.
Les données IRMf à l'état de repos ont été acquises pendant quelques minutes 10 avec les yeux ouverts avec un scanner Siemens Trio 3T et une bobine de tête à canal 32 au Centre d'imagerie cérébrale Wolfson de l'Université de Cambridge. Une séquence d'imagerie planaire multi-échos avec écho a été utilisée avec reconstruction en ligne (temps de répétition, 2.47, angle de retournement, 78 °, taille de la matrice 64 × 64, résolution dans le plan, 3.75 mm; FOV, 240 mm. Acquisition de tranche Épaisseur de tranche 32 en mm avec% écart 3.75; facteur iPAT, 10; bande passante = 3 Hz / pixel; temps d'écho (TE) = 1,698, 12, 28 et 44 ms).
L'analyse en composantes indépendantes multi-écho (ME-ICAv2.5 beta6 ; http://afni.nimh.nih.gov ) a été utilisée pour l'analyse et le débruitage des données IRMf de repos multi-écho. ME-ICA décompose les données IRMf multi-écho en composantes indépendantes grâce à FastICA. La variation relative du signal BOLD est linéairement dépendante du TE, une caractéristique de la décroissance T2*. Cette dépendance au TE est mesurée à l'aide du pseudo- F -statistique kappa, les composantes fortement corrélées au TE présentant des scores kappa élevés [Kundu et al., 2012 ]. Les composantes non-BOLD sont identifiées par leur indépendance au TE, mesurée par le pseudo- F -statistique rho. Les composantes sont ainsi classées comme BOLD ou non-BOLD en fonction de leurs pondérations respectives par les valeurs kappa et rho [Kundu et al., 2012 ]. Les composantes non-BOLD sont éliminées par projection, ce qui permet de débruiter les données des artefacts de mouvement, physiologiques et liés au scanner de manière robuste, selon des principes physiques. Les images écho-planaires débruitées de chaque participant ont été co-enregistrées avec leur image MPRAGE et normalisées au modèle de l'Institut neurologique de Montréal (MNI). Un lissage spatial a été appliqué à l'aide d'un noyau gaussien (largeur à mi-hauteur = 6 mm). La série temporelle de chaque voxel a été filtrée passe-bande temporellement (0.008 < f < 0.09 Hz). L'examen anatomique de chaque participant a été segmenté en substance grise (SG), substance blanche (SB) et liquide céphalo-rachidien (LCR). Les composantes principales significatives des signaux de la SB et du LCR ont été supprimées.
L'analyse de connectivité fonctionnelle a été réalisée à l'aide d'une approche basée sur une région d'intérêt (ROI) avec la boîte à outils CONN-fMRI Functional Connectivity [Whitfield-Gabrieli et Nieto-Castanon, 2012 ] pour SPM ( http://www.fil.ion.ucl.ac.uk/spm/software/spm8 /).
Analyses statistiques
Les caractéristiques des sujets et leurs scores aux questionnaires ont été comparés entre les groupes à l'aide de tests t bilatéraux, sans supposer l'égalité des variances. Toutes les analyses statistiques ont été réalisées avec le logiciel R (version 3.2.0) [RC Team, 2014 ].
Structural
Pour les comparaisons de groupes, les volumes de matière grise des sujets CSB et HV ont été intégrés dans un modèle linéaire général (GLM). Les données ont été corrigées en fonction du volume intracrânien total des participants à l'aide d'une mise à l'échelle proportionnelle et d'un masque explicite dans SPM. Les comparaisons de groupes ont été ajustées en fonction de l'âge et des scores de dépression, utilisés comme covariables. Nous nous sommes concentrés sur les régions d'intérêt hypothétiques a priori identifiées dans notre étude précédente [Voon et al., 2014 ] et dans des méta-analyses d'études sur la réactivité aux stimuli liés à la drogue [Kühn et Gallinat, 2011 ], à savoir le VS gauche et droit, l'amygdale gauche et droite et le cortex cingulaire antérieur dorsal, en utilisant une correction pour petits volumes (SVC) avec correction pour erreurs de type I familiales (FWE) et un seuil de signification de p < 0.01 (correction de Bonferroni pour les comparaisons multiples). Pour ces analyses SVC, nous avons utilisé une région d'intérêt anatomique du VS, décrite précédemment [Murray et al., 2008 ], dessinée manuellement à l'aide de MRIcro d'après la définition du VS proposée par Martinez et al. [ 2003 ]. La région d'intérêt (ROI) de l'amygdale a été obtenue à partir de l'atlas AAL (Automated Anatomical Labelling). La région dorsale du cortex cingulaire antérieur (ACC) a été modifiée manuellement à l'aide de l'outil MarsBaR ROI [Brett et al., 2002 ], en se basant sur la ROI du cortex cingulaire de l'atlas AAL. Sa limite antérieure correspondait à l'extrémité du genou du corps calleux [Cox et al., 2014 ; Desikan et al., 2006 ] et sa limite postérieure à l'extrémité postérieure de ce même genou [Desikan et al., 2006 ]. Des analyses complémentaires, ajustées en fonction des scores BDI, ont été réalisées.
État de repos
Afin de comparer la connectivité entre les sujets atteints de CSB et les sujets sains, des cartes de connectivité cérébrale globale (ROI-voxel) ont été calculées pour la région d'intérêt de l'amygdale gauche, en se basant sur les différences volumétriques observées entre les groupes. Les cartes de connectivité obtenues ont été intégrées à des modèles linéaires généralisés (GLM) factoriels complets pour comparer la connectivité cérébrale globale entre les groupes, après ajustement pour l'âge, puis après ajustement pour l'âge et la dépression. Un seuil de signification de p < 0.05, corrigé pour les comparaisons multiples (FWE) au niveau du cluster cérébral, a été retenu pour les différences entre les groupes.
RÉSULTATS
Caractéristiques
Vingt-trois hommes hétérosexuels présentant un comportement sexuel compulsif (âge moyen : 26.9 ans ; écart-type : 6.22 ans) et 69 hommes hétérosexuels témoins appariés en âge (âge moyen : 25.6 ans ; écart-type : 6.55 ans) ont participé à l’étude (tableau 2 ). Parmi eux, 19 sujets présentant un comportement sexuel compulsif et 55 témoins ont rempli des questionnaires comportementaux. Les sujets présentant un comportement sexuel compulsif avaient des scores plus élevés à l’échelle de dépression de Beck (BDI) ( p = 0.006) et à l’échelle UPPS-P ( p < 0.001) que les témoins. D’autres scores comportementaux, notamment la fréquence et la gravité de la consommation de pornographie et d’Internet, ont été rapportés ailleurs [Mechelmans et al., 2014 ; Voon et al., 2014 ].
Tableau 2. Données démographiques et comportementales des sujets à comportement sexuel compulsif et des volontaires sains
|
le Groupe |
Âge |
BDI |
UPPS-P |
|---|---|---|---|
Participants 4 manquants dans 23.
Participants 14 manquants dans 69.
|
|||
| CSB (N = 23) | 26.9 (6.22) | 14.82 (11.85)a | 152.21 (16.50)a |
| HV (N = 69) | 25.6 (6.55) | 6.03 (7.20)b | 124.87 (20.73)b |
| T-valeur (P-valeur) | 0.88 (P = 0.380) | 3.04 (P = 0.006) | 5.81 (P <0.001) |
Structural
L'analyse des régions d'intérêt (ROI) de l'amygdale gauche et droite, du VS gauche et droit et du cortex cingulaire antérieur dorsal a révélé une augmentation du volume de matière grise de l'amygdale gauche chez les patients atteints de CSB par rapport aux sujets témoins appariés (corrigé pour les comparaisons multiples, p = 0.0096, Z = 3.37, xyz = −28, −4, −15) (correction de Bonferroni pour les comparaisons multiples, p < 0.01) (Fig. 1 ). Toutes les autres analyses de ROI n'ont pas montré de différence significative. L'ajustement pour la dépression n'a pas modifié les résultats concernant les différences entre les groupes.

Figure 1.

Morphométrie basée sur les voxels dans les comportements sexuels compulsifs. Un volume plus important de l'amygdale gauche est observé chez les personnes présentant des comportements sexuels compulsifs par rapport aux volontaires sains. L'image est seuillée à P < 0.005 (non corrigé) à des fins d'illustration. [Figure en couleur disponible sur wileyonlinelibrary.com ]
État de repos
À partir des résultats structuraux, nous avons examiné la connectivité fonctionnelle au repos en utilisant l'amygdale gauche comme région d'intérêt. Nous avons observé une connectivité réduite avec le cortex préfrontal dorsolatéral (DLPFC) bilatéral (DLPFC droit : p = 0.012, Z = 4.11, xyz = 31 42 16 ; DLPFC gauche : p = 0.003, Z = 3.96, xyz = −27 52 23) (Fig. 2 ). L'ajustement pour le score BDI n'a pas modifié la significativité des résultats (DLPFC droit : p = 0.001, Z = 4.54, xyz = 31 61 23 ; DLPFC gauche : p = 0.003, Z = 4.26, xyz = −29 49 35).

Figure 2.

Connectivité fonctionnelle au repos de l'amygdale gauche. Les comportements sexuels compulsifs sont associés à une diminution de la connectivité fonctionnelle au repos de l'amygdale gauche (zone d'intérêt, à gauche) avec le cortex préfrontal dorsolatéral bilatéral (au centre et à droite), comparativement aux volontaires sains. L'image est seuillée à P < 0.005 (non corrigé pour l'illustration). [Figure en couleur disponible sur wileyonlinelibrary.com ]
DISCUSSION
Nous avons étudié les différences neuronales structurelles et fonctionnelles chez les individus atteints de CSB par rapport aux HV appariées. Les sujets CSB avaient augmenté le volume de l'amygdale gauche et réduit la connectivité fonctionnelle pendant le repos entre l'amygdale gauche et le DLPFC bilatéral.
L'amygdale est impliquée dans le traitement de la saillance environnementale qui oriente le comportement. Les noyaux de l'amygdale relient des stimuli environnementaux ou internes initialement neutres à des représentations associatives de leur valeur affective, propageant ainsi la saillance motivationnelle induite par les indices [Everitt et al., 2003 ], ainsi que le traitement du contrôle émotionnel [Cardinal et al., 2002 ; Gottfried et al., 2003 ]. L'augmentation du volume de l'amygdale observée est en contradiction avec plusieurs études sur les troubles liés à la consommation d'alcool [Makris et al., 2008 ; Wrase et al., 2008 ], car les études portant sur ce type d'addiction font état d'une diminution du volume de l'amygdale, lorsque des mesures volumétriques ont été effectuées. Une explication possible de cette divergence est que la consommation prolongée de substances entraîne des modifications neuroplastiques et une toxicité durables [Kovacic, 2005 ]. Reissner et Kalivas, 2010 ] qui pourraient contribuer à la persistance du comportement de recherche de drogue [Gass et Olive, 2008 ]. Une telle neurotoxicité pourrait certainement contribuer à l'atrophie généralisée observée dans les addictions aux substances [Bartzokis et al., 2000 ; Carlen et al., 1978 ; Mechtcheriakov et al., 2007 ]. Cette neurotoxicité liée aux drogues est probablement un problème majeur dans les troubles liés à l'usage de substances, mais moins préoccupante dans les addictions comportementales. Dans une étude récente sur les comportements sexuels à risque (CSR) utilisant l'IRMf, l'exposition à des stimuli sexuellement explicites chez les sujets CSR, comparée à celle des sujets non-CSR, était associée à une activation de l'amygdale [Voon et al., 2014 ]. Il reste à déterminer si la différence de volume de l'amygdale est un trait préexistant prédisposant les individus aux CSR ou si elle est liée à une exposition excessive.
Le fonctionnement du cortex préfrontal dorsolatéral (DLPFC) est reconnu pour son implication dans de nombreux aspects du contrôle cognitif [MacDonald et al., 2000 ] et de la mémoire de travail [Petrides, 2000 ]. Notre observation d'une connectivité fonctionnelle réduite entre l'amygdale et le DLPFC concorde avec les données existantes sur la connectivité dans ces régions. Cette connectivité fonctionnelle est importante pour la régulation émotionnelle, comme l'ont montré des études antérieures : une connectivité réduite entre l'amygdale et le DLPFC chez les personnes souffrant de dépendance au jeu vidéo est associée à une impulsivité accrue [Ko et al., 2015 ]. Une autre étude, mesurant la capacité à moduler les réponses émotionnelles négatives par des stratégies cognitives, a démontré que l'activité dans des zones spécifiques du cortex frontal, notamment le DLPFC, était corrélée à l'activité de l'amygdale, et que la connectivité fonctionnelle entre ces régions dépendait de l'application de stratégies cognitives pour la régulation des émotions négatives [Banks et al., 2007 ]. La connectivité entre l'amygdale et le cortex préfrontal dorsolatéral (DLPFC) a également été associée à la dépression unipolaire [Siegle et al., 2007 ]. Les comportements sexuels à risque (CSB) ont été associés à des symptômes dépressifs et anxieux, et le stress peut déclencher de tels comportements ; cependant, nos résultats n'étaient pas liés aux scores de dépression. Le DLPFC a également été impliqué dans une étude menée auprès d'hommes ayant une forte consommation de pornographie, où une plus grande consommation était associée à une connectivité fonctionnelle réduite entre le DLPFC et le striatum lors du visionnage d'images explicites [Kühn et Gallinat, 2014 ].
Nous avertissons que ces résultats sont préliminaires compte tenu de la petite taille de l'échantillon de sujets CSB, bien que nous comparions notamment ce groupe à un grand échantillon de HV apparié. L’homogénéité de la population est une des limites de l’étude. Comme nous n'avons pas inclus les sujets atteints d'autres troubles psychiatriques comorbides pouvant jouer un rôle mécaniste, ces résultats doivent être prudemment extrapolés aux sujets CSB présentant d'autres comorbidités. De plus, les anomalies structurelles et fonctionnelles observées chez les sujets atteints de CSB peuvent être liées à des traits préexistants ou peuvent être le résultat des effets de CSB. Par conséquent, cette étude ne permet pas de tirer des conclusions sur les effets de CSB. Les futures études devraient viser à évaluer les mesures longitudinales afin de déterminer les différences entre les tendances d'état et de trait et les anomalies neurales pré-morbides potentielles dans des échantillons de plus grande taille et avec des sexes mixtes.
Nos résultats actuels mettent en évidence des volumes accrus dans une région impliquée dans la saillance motivationnelle et une connectivité réduite au repos des réseaux de contrôle régulateur préfrontaux descendants. La perturbation de ces réseaux pourrait expliquer les comportements aberrants face à une récompense environnementale saillante ou une réactivité accrue aux stimuli incitatifs saillants. Bien que nos résultats volumétriques contrastent avec ceux observés dans les troubles liés à l'usage de substances (TUS), ces résultats pourraient refléter des différences liées aux effets neurooxiques d'une exposition chronique à la drogue. Des données récentes suggèrent des recoupements potentiels avec le processus d'addiction, soutenant particulièrement les théories de la motivation incitative. Nous avons montré que l'activité de ce réseau de saillance est renforcée suite à une exposition à des stimuli sexuellement explicites très saillants ou préférés [Brand et al., 2016 ; Seok et Sohn, 2015 ; Voon et al., 2014 ], ainsi qu'à un biais attentionnel accru [Mechelmans et al., 2014 ] et à un désir spécifique au stimulus sexuel, mais non à un désir sexuel généralisé [Brand et al., 2016 ; Voon et al., 2014 ]. L'attention accrue portée aux stimuli sexuellement explicites est également associée à une préférence pour ces mêmes stimuli, confirmant ainsi le lien entre le conditionnement sexuel et le biais attentionnel [Banca et al., 2016 ]. Ces résultats, qui mettent en évidence une activité accrue liée aux stimuli sexuellement conditionnés, diffèrent de ceux concernant le résultat (ou stimulus inconditionné), où une habituation accrue, possiblement compatible avec le concept de tolérance, augmente la préférence pour de nouveaux stimuli sexuels [Banca et al., 2016 ]. Ensemble, ces résultats contribuent à élucider la neurobiologie sous-jacente du trouble du comportement sexuel compulsif (TCSC), ouvrant la voie à une meilleure compréhension de ce trouble et à l'identification de marqueurs thérapeutiques potentiels.
REMERCIEMENTS
Nous tenons à remercier le personnel de la WBIC pour son expertise et son assistance dans la collecte des données d'imagerie, ainsi que nos participants pour leur temps et leur engagement. Nous voudrions également remercier Thaddeus Birchard et Paula Hall pour l’aiguillage des patients pour l’étude. L’Institut des neurosciences comportementales et cliniques (BCNI) est soutenu par le Wellcome Trust et le Medical Research Council.
Références
- Ashburner J (2007): Algorithme d'enregistrement d'images difféomorphes rapide. Neuroimage 38: 95 – 113.
- Banca P, Morris LS, Mitchell S, Harrison NA, Potenza, MN et Voon V (2016): nouveauté, conditionnement et biais d'attention pour les récompenses sexuelles. J Psychiatr Res 72: 91 – 101.
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 2
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 307
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 75
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times a cité: 18323
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 1
- Banks SJ, Eddy KT, Angstadt M, PJ Nathan, Phan KL (2007): Connectivité frontale amygdale lors de la régulation des émotions. Soc Cogn Affect Neurosci 2: 303 – 312.
- CrossRef |
- Web of Science® Times a cité: 1
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 1087
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times a cité: 342 |
- ADS
- Bartzokis G, Beckson M, Lu PH, Edwards N, Rapoport R, Wiseman E, Bridge P (2000): Réduction du volume cérébral liée à l'âge des toxicomanes à l'amphétamine et à la cocaïne et aux témoins normaux: Implications pour la recherche en toxicomanie. Psychiatry Res Neuroimaging 98: 93 – 102.
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 16 |
- ADS
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 7
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 1782
- Bibliothèque en ligne Wiley |
- PubMed |
- Web of Science® Times a cité: 245
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times a cité: 217
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times a cité: 597 |
- ADS
- CrossRef |
- PubMed |
- Web of Science®
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 19
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 27
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 21
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 172
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 8
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 5
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times a cité: 30
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times a cité: 1
- Bibliothèque en ligne Wiley |
- PubMed |
- Web of Science® Times a cité: 76
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 23
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 63
- Beck AT, quartier C, Mendelson M (1961): inventaire de dépression de Beck (BDI). Arch Gen Psychiatry 4: 561 – 571.
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times a cité: 1895 |
- ADS
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times a cité: 134
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times a cité: 313
- Marque M, J Snagowski, C Laier, S Maderwald (2016): l'activité striatale totale lorsque l'on regarde des images pornographiques préférées est corrélée à des symptômes de dépendance à la pornographie sur Internet. Neuroimage 129: 224 – 232.
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 7 |
- ADS
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 70
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 28
- CrossRef |
- CAS |
- Web of Science® Times a cité: 196
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times a cité: 255
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 3
- Bibliothèque en ligne Wiley |
- PubMed |
- Web of Science® Times a cité: 20
- Brett M, Anton JL, R Valabregue, Poline JB (2002): Analyse de régions d'intérêt à l'aide de la boîte à outils MarsBar pour SPM 99. Neuroimage 16: S497.
- Bibliothèque en ligne Wiley |
- PubMed |
- Web of Science® Times a cité: 43
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times a cité: 63
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 1
- PubMed |
- Web of Science® Times a cité: 7675
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 383
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 4
- Bibliothèque en ligne Wiley |
- PubMed |
- Web of Science® Times a cité: 38
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 110
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 25
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 3
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 25
- CrossRef |
- Web of Science® Times a cité: 1108
- CrossRef |
- PubMed
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 92
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 3
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 72 |
- ADS
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 31 |
- ADS
- CrossRef |
- PubMed |
- Web of Science® Times a cité: 66
- Cai C, Yuan K, Yin J, Feng D, Bi Y, Li Y, D Yu, Jin C, Q Q, Tian J (2015): la morphométrie de Striatum est associée à des déficits de contrôle cognitif et à la sévérité des symptômes dans le trouble du jeu sur Internet. Comportement d'imagerie cérébrale 10: 12.
- Cardinal RN, Juge Parkinson, Hall J, Everitt BJ (2002): Émotion et motivation: rôle de l'amygdale, du striatum ventral et du cortex préfrontal. Neurosci Biobehav Rev 26: 321 – 352.
- Carlen PL, Wortzman G, RC Holgate, DA Wilkinson, Rankin JC (1978): atrophie cérébrale réversible chez des alcooliques chroniques récemment abstinents, mesurée par tomodensitométrie. Science 200: 1076 – 1078.
- Carnes P, Delmonico DL, Griffin E (2007): À l'ombre du réseau: Se libérer du comportement sexuel en ligne compulsif, 2nd ed. Centre-ville, MN: Éditions Hazelden.
- Connolly CG, RP Bell, JJ Foxe, Garavan H (2013): Changements de matière grise dissociés avec dépendance prolongée et abstinence prolongée chez les consommateurs de cocaïne. PLoS One 8: e59645.
- Cox SR, Ferguson KJ, Royle NA, Shenkin SD, MacPherson SE, MacLullich AMJ, Deary IJ, Wardlaw JM (2014): Une revue systématique des techniques de parcellisation du lobe frontal du cerveau en imagerie par résonance magnétique. Brain Struct Funct 219: 1 – 22.
- Desikan RS, F Ségonne F, Fischl B, Quinn BT, Dickerson BC, Blacker D, Buckner RL, Dale AM, Maguire RP, Hyman BT (2006): un système de marquage automatisé permettant de subdiviser le cortex cérébral humain en IRM dans des régions gyriques. d'intérêt. Neuroimage 31: 968 – 980.
- Everitt BJ, Cardinal RN, Juge Parkinson, Robbins TW (2003): Comportement d'appétit: impact des mécanismes d'apprentissage émotionnel dépendants de l'amygdale. Ann NY Acad Sci 985: 233 – 250.
- Gass JT, Olive MF (2008): Substrats glutamatergiques de la toxicomanie et de l'alcoolisme. Biochem Pharmacol 75: 218 – 265.
- Gottfried JA, O'Doherty J, Dolan RJ (2003): Encodage de la valeur de récompense prédictive dans l'amygdale humaine et le cortex orbitofrontal. Science 301: 1104-1107.
- Grant JE, BL Odlaug, Chamberlain SR (2015): Épaisseur corticale réduite dans le trouble du jeu: étude morphométrique par IRM. Clinique de psychiatrie archivistique Neurosci 265: 655 – 661.
- van Holst RJ, MB de Ruiter, van den Brink W, DJ Veltman, Goudriaan AE (2012): étude morphométrique à base de voxels comparant les problèmes de joueurs, les alcooliques et les contrôles sains. La consommation d'alcool dépend de 124: 142 – 148.
- Hong SB, Kim JW, Choi EJ, Kim HH, Suh JE, Kim CD, Klauser P, Whittle S, Yelcel M, Pantelis C, Yi SH (2013): Réduction de l'épaisseur corticale orbitofrontale chez l'adolescent de sexe masculin avec dépendance à Internet. Behav Brain Funct 9: 11.
- Joutsa J, Saunavaara J, Parkkola R, Niemelä S, Kaasinen V (2011): Anomalie étendue de l'intégrité de la substance blanche du cerveau dans le jeu pathologique. Psychiatry Res - Neuroimaging 194: 340–346.
- Kafka MP (2010): Trouble hypersexuel: Proposition de diagnostic du DSM-V. Arch Sex Behav 39: 377 – 400.
- Ko CH, Hsieh TJ, Wang PW, Lin WC, CF Yen, CS Chen, YEN JY (2015): densité de matière grise altérée et perturbation de la connectivité fonctionnelle de l'amygdale chez les adultes souffrant de trouble du jeu sur Internet. Prog Neuropsychopharmacol Biol Psychiatrie 57: 185 – 192.
- Koehler S, E Hasselmann, T Wüstenberg, A Heinz, N Romanczuk-Seiferth (2013): Volume plus élevé de striatum ventral et de cortex préfrontal droit dans le jeu pathologique. Brain Struct Funct 220: 469 – 477.
- Kovacic P (2005): Mécanisme unificateur de la toxicomanie et de la toxicité des médicaments maltraités s’appliquant aux médiateurs de la dopamine et du glutamate: espèces à transfert d’électrons et à oxygène réactif. Hypothèses médicales 65: 90 – 96.
- Kraus SW, Voon V, MN Potenza (2016): Neurobiologie du comportement sexuel compulsif: Science émergente. Neuropsychopharmacologie 41: 385 – 386.
- Kühn S, Gallinat J (2011): Biologie commune de l'état de manque à la consommation de drogues légales et illégales - une méta-analyse quantitative de la réponse cérébrale à la réactivité de réplication. Eur J Neurosci 33: 1318 – 1326.
- Kühn S, Gallinat J (2014): Structure cérébrale et connectivité fonctionnelle associées à la consommation de pornographie: Le cerveau dans le porno. JAMA Psychiatry 71: 827 – 834.
- Kundu P, Inati SJ, Evans JW, Luh WM, Bandettini PA (2012): Différenciation des signaux BOLD et non BOLD dans les séries temporelles IRMf à l'aide d'un EPI multi-écho. Neuroimage 60: 1759 – 1770.
- Lin X, Dong G, Wang Q, X (2014): volume de matière grise et de substance blanche anormal dans «les accros au jeu sur Internet». Comportement de dépendance 40C: 137 – 143.
- MacDonald AW, Cohen JD, VA Stenger, Carter CS (2000): Dissociation du rôle du cortex dorsolatéral préfrontal et antérieur cingulaire dans le contrôle cognitif. Science 288: 1835 – 1838.
- Makris N, M Oscar-Berman, Jaffin SK, Hodge SM, DN Kennedy, Caviness VS, Marinkovic K, Breiter HC, GP Gasic, Harris GJ (2008): Volume réduit du système de récompense du cerveau dans l'alcoolisme. Biol Psychiatry 64: 192 – 202.
- Martinez D, M Slifstein, Broft A, O Mawlawi, R Chatterjee, Hwang DR, Huang Y, Cooper T, Kegeles L, Zarahn E, Abi-Dargham A, Haber SN, Laruelle M (2003): Transmission de la dopamine mésolimbique humaine en imagerie tomographie par émission de positrons. Partie II: Libération de dopamine induite par l'amphétamine dans les subdivisions fonctionnelles du striatum. Métab débit sanguin J Cereb 23: 285 – 300.
- Mcgahuey CA, Gelenberg AJ, Cindi A, Moreno FA, Delgado PL, Mcknight KM, Manber R (2011): Journal of sex & marital the arizona sexual experience scale (asex): fiabilité et validité. J Sex Marital Ther 26: 37–41.
- Mechelmans DJ, Irvine M, Banca P, Porter L, Mitchell S, TB Mole, Lapa TR, Harrison NA, Potenza, MN, Voon V (2014): biais d'attention accru envers les signaux sexuellement explicites chez les individus avec et sans comportements sexuels compulsifs. PLoS One 9: e105476.
- Mechtcheriakov S, C Brenneis, Egger K, Koppelstaetter F, Schocke M, Marksteiner J (2007): Un schéma distinct généralisé d'atrophie cérébrale chez les patients ayant une dépendance à l'alcool révélée par la morphométrie à base de voxel. J Neurol Neurosurg Psychiatry 78: 610 – 614.
- Miner MH, Raymond N, Mueller B. a, Lloyd M, Lim KO (2009): Enquête préliminaire sur les caractéristiques impulsives et neuroanatomiques du comportement sexuel compulsif. Psychiatry Res - Neuroimaging 174: 146–151.
- Murray GK, RP Corlett, Clark L, Pessiglione M, AD Blackwell, G Honey, Jones PB, Bullmore ET, TW Robbins, Fletcher PC (2008): Substantia nigra / récompense tegmentale ventrale, perturbation d'erreur dans la psychose. Mol Psychiatry 13: 267 – 276.
- Petrides M (2000): Le rôle du cortex préfrontal médio-dorsolatéral dans la mémoire de travail. Exp Brain Res 133: 44 – 54.
- Prause N, Steele VR, C Staley, D Sabatinelli, Proudfit GH (2015): Modulation des potentiels positifs tardifs par des images sexuelles chez des utilisateurs à problème et des contrôles incompatibles avec une «dépendance au porno». Biol Psychol 109: 192 – 199.
- Rando K, Tuit K, J Hannestad, J Guarnaccia, Sinha R (2013): Différences entre les sexes dans la diminution du volume de matière grise limbique et corticale dans la dépendance à la cocaïne: une étude morphométrique à base de voxel. Addict Biol 18: 147 – 160.
- Équipe RC (2014): R: Un langage et un environnement pour l’informatique statistique. Vienne, Autriche: Fondation R pour l'informatique statistique. ISBN 3-900051-07-0.
- Reid RC, Charpentier BN, Crochet JN, S Garos, Manning JC, Gilliland R, Cooper EB, McKittrick H, Davtian M, Fong T (2012): Rapport des résultats d'un essai sur le terrain du DSM-5 pour le trouble hypersexuel. J Sex Med 9: 2868 – 2877.
- Reissner KJ, Kalivas PW (2010): Utilisation de l'homéostasie du glutamate comme cible du traitement des troubles de dépendance. Comportement Pharmacol 21: 514.
- Seok JW, Sohn JH (2015): Substrats neuraux du désir sexuel chez des individus présentant un comportement hypersexuel problématique. Comportement frontal Neurosci 9: 1 – 11.
- Sheehan DV, Y Lecrubier, Sheehan KH, Amorim P, J Janavs, E Weiller, Hergueta T, Baker R et Dunbar GC (1998): Le mini-entretien neuropsychiatrique international (mini): développement et validation d'un entretien psychiatrique diagnostique structuré pour DSM-IV et ICD-10. J Clin Psychiatry 59: 22 – 33.
- Siegle GJ, Thompson W, Carter CS, SR Steinhauer, ME Thase (2007): augmentation de l'amygdale et diminution des réponses BOLD préfrontales dorsolatérales dans la dépression unipolaire: caractéristiques connexes et indépendantes. Biol Psychiatry 61: 198 – 209.
- Sun Y, Sun J, Zhou Y, Ding W, X Chen, Zhuang Z, Xu J, Du Y (2014): Évaluation des altérations de la microstructure in vivo dans la matière grise à l'aide de DKI dans la dépendance au jeu sur Internet. Behav Brain Funct 10: 37.
- Taki Y, S Kinomura, Sato K, Goto R, Inoue K, Okada K, Ono S, Kawashima R et Fukuda H (2006): le volume global de matière grise et le volume régional de matière grise sont en corrélation négative avec la consommation d'alcool à vie pour le non alcool Japonais dépendants: analyse volumétrique et morphométrie à base de voxel. Alcohol Clin Exp Res 30: 1045 – 1050.
- J Tanabe, JR Tregellas, M Dalwani, L Thompson, Owens E, T Crowley, M Banich (2009): la matière grise du cortex orbitofrontal médial est réduite chez les individus dépendant de la substance. Biol Psychiatry 65: 160 – 164.
- Voon V, Mole TB, Banca P, Porter L, Morris L, Mitchell S, Lapa TR, Karr J, Harrison NA, Potenza, MN, Irvine M (2014): Corrélats neuraux de la réactivité de la réplique sexuelle chez les individus avec et sans comportements sexuels compulsifs . PLoS One 9: e102419.
- Wang H, Jin C, Yuan K, Shakir TM, Mao C, Niu X, Niu C, Guo L, Zhang M (2015): modification du volume de la matière grise et du contrôle cognitif chez les adolescents présentant des troubles du jeu sur Internet. Comportement frontal Neurosci 9: 1 – 7.
- Weng CB, Qian RB, Fu XM, Lin B, Han XP, Niu CS, Wang YH (2013): anomalies de la matière grise et de la substance blanche dans la dépendance au jeu en ligne. Eur J Radiol 82: 1308 – 1312.
- Whiteside SP, Lynam DR (2001): Modèle à cinq facteurs et impulsivité: Utilisation d'un modèle structurel de la personnalité pour comprendre l'impulsivité. Diff. Pers. Individuel 30: 669 – 689.
- Whitfield-Gabrieli S, Nieto-Castanon A (2012): Boîte à outils de connectivité fonctionnelle pour les réseaux cérébraux corrélés et anticorrélés. Brain Connect 2: 125 – 141.
- Wrase J, Makris N, Braus DF, Mann K, Smolka MN, DN Kennedy, Caviness VS, Hodge SM, Tang L., Albaugh M, Ziegler D. a, Davis OC, Kissling C, Schumann G, Breiter HC, Heinz A ( 2008): volume d’amygdala associé à une rechute d’abus d’alcool et à un état de manque. Am J Psychiatry 165: 1179 – 1184.
- Xiao P, Dai Z, J Zhong, Zhu Y, H Shi et Pan P (2015): Déficits régionaux en matière de matière grise dans la dépendance à l'alcool: méta-analyse d'études de morphométrie à base de voxel. La consommation d'alcool dépend de 153: 22 – 28.
- Yuan K, Qin W, Wang G, Zeng F, Zhao L, Yang X, Liu P, Liu J, Sun J, von Deneen KM, Gong Q, Li Y, Tian J (2011): Anomalies de la microstructure chez des adolescents ayant une dépendance à Internet désordre. PLoS One 6: e20708.
- Yuan K, Cheng P, Dong T, Bi Y, Xing L, Yu D, Zhao L, Dong M, von Deneen KM, Liu Y, Qin W, Tian J (2013): Anomalies d'épaisseur corticale à la fin de l'adolescence avec dépendance au jeu en ligne . PLoS One 8: e53055.
- Zhou Y, Lin FC, Du YS, Qin LD, Zhao ZM, Xu JR, Lei H (2011): Anomalies de la matière grise dans la dépendance à Internet: Une étude de morphométrie à base de voxel. Eur J Radiol 79: 92 – 95.