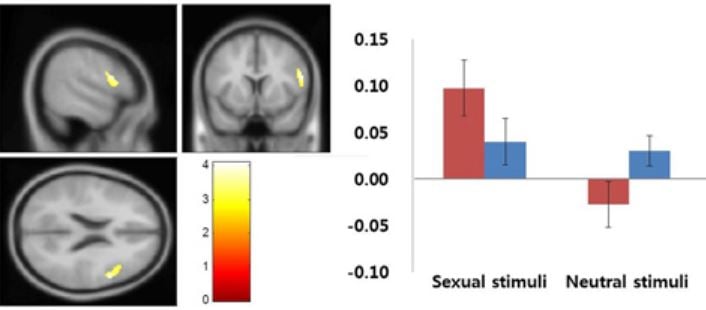
COMMENTAIRES: Cette étude coréenne sur l'IRMf reproduit d'autres études sur le cerveau menées auprès d'utilisateurs du porno. Comme les études de l'Université de Cambridge, il a été constaté chez les toxicomanes sexuels des schémas d'activation du cerveau induits par des signaux qui reflétaient ceux des toxicomanes. Conformément à plusieurs études allemandes, il a révélé des altérations du cortex préfrontal correspondant aux modifications observées chez les toxicomanes.
Bien qu'il reproduise des aspects d'autres études, ce document coréen ajoute également ce qui suit:
- Il a examiné d'autres régions du cerveau impliquées dans la réactivité induite par le signal et a trouvé que toutes réagissaient avec une intensité beaucoup plus grande que chez les témoins sains. Autres régions du cerveau: thalamus, noyau caudé gauche, gyrus supramarginal droit et gyrus cingulaire antérieur dorsal droit.
- Ce qui est nouveau, c'est que les résultats correspondaient parfaitement aux modèles de cortex préfrontal observés chez les toxicomanes: une plus grande réactivité aux images sexuelles, mais une réponse inhibée à d'autres stimuli normaux. Chez un toxicomane, les signaux liés à la dépendance font que le cortex préfrontal fait exploser le circuit de récompense avec des signaux «allez-y». Cela entraîne également moins d'excitation en réponse aux récompenses quotidiennes normales. Autrement dit, moins de motivation pour rechercher des récompenses normales.
De face. Comportement Neurosci., 30 Novembre 2015
Ji-Woo Seok et Jin-Hun Sohn *
- Département de psychologie, Institut de recherche sur le cerveau, Université nationale de Chungnam, Daejeon, Corée du Sud
Les études sur les caractéristiques des personnes atteintes de troubles hypersexuels se sont accumulées en raison des préoccupations croissantes concernant les comportements hypersexuels problématiques (PHB). Actuellement, on en sait relativement peu sur les mécanismes comportementaux et neuronaux sous-jacents du désir sexuel. Notre étude visait à étudier les corrélats neuronaux du désir sexuel avec l'imagerie par résonance magnétique fonctionnelle liée à l'événement (IRMf). Vingt-trois personnes atteintes de PHB et 22 témoins sains de même âge ont été scannées alors qu'elles regardaient passivement des stimuli sexuels et non sexuels. Les niveaux de désir sexuel des sujets ont été évalués en réponse à chaque stimulus sexuel. Par rapport aux témoins, les personnes atteintes de PHB ont éprouvé un désir sexuel plus fréquent et accru lors de l'exposition à des stimuli sexuels. Une plus grande activation a été observée dans le noyau caudé, le lobe pariétal inférieur, le gyrus cingulaire antérieur dorsal, le thalamus et le cortex préfrontal dorsolatéral dans le groupe PHB que dans le groupe témoin. De plus, les modèles hémodynamiques dans les zones activées différaient entre les groupes. Conformément aux résultats des études d'imagerie cérébrale de la dépendance aux substances et au comportement, les individus présentant les caractéristiques comportementales du PHB et un désir accru ont présenté une activation modifiée dans le cortex préfrontal et les régions sous-corticales. En conclusion, nos résultats aideront à caractériser les comportements et les mécanismes neuronaux associés des personnes atteintes de PHB.
Introduction
L’hypersexualité problématique (HTP) se définit comme la participation continue à des actes sexuels répétés, sans contrôle sur la compulsivité et les comportements sexuels excessifs, malgré la conscience des conséquences négatives associées ( Goodman, 1993 ; Carnes, 2001 , 2013 ). Les personnes souffrant d’HTP peuvent rencontrer de grandes difficultés dans leurs relations familiales et professionnelles. De plus, elles sont plus exposées aux risques de contracter des infections sexuellement transmissibles ou de subir des grossesses non désirées suite à des relations sexuelles à risque ( Schneider et Schneider, 1991 ; Kuzma et Black, 2008 ). Aux États-Unis, 3 à 6 % de la population générale et des étudiants sont atteints d’HTP ( Coleman, 1992 ; Black, 2000 ; Seegers, 2003 ). En Corée, environ 2 % des étudiants sont concernés ( Kim et Kwak, 2011 ). Compte tenu de sa forte prévalence et des problèmes qui y sont liés, les risques associés sont de plus en plus reconnus au sein de la société, et l’incidence de l’HTP semble être en augmentation.
Bien que la gravité de l'hypersexualité masculine soit désormais reconnue, elle n'a pas été incluse dans le DSM-5 ( American Psychiatric Association, 2013 ). Le débat persiste quant à la classification de l'hypersexualité comme maladie ; par conséquent, il n'existe aucun consensus sur sa définition, sa classification ou ses critères diagnostiques. Ceci reflète la difficulté d'établir une norme de classification claire, en raison du manque d'études objectives et empiriques sur les facteurs liés à l'hypersexualité.
Bien que la classification de l'hypersexualité comme maladie reste controversée, il a été proposé de la classer parmi les troubles addictifs, car elle présente des symptômes similaires à ceux d'autres formes d'addiction ( Goodman, 2001 ; Kor et al., 2013 ). L'augmentation du désir est étroitement liée aux aspects cliniquement pertinents des troubles addictifs. Des études d'imagerie ont montré que le fonctionnement des régions cérébrales impliquées dans le désir est altéré chez les personnes souffrant de toxicomanie ( Garavan et al., 2000 ; Tapert et al., 2003 ; Franklin et al., 2007 ; McClernon et al., 2009 ). Les addictions comportementales, telles que le jeu, les jeux sur Internet et les comportements sexuels, qui n’impliquent pas l’ingestion directe de drogues, impliquent également un désir accru qui semble être lié à des fonctions altérées dans les régions cérébrales concernées ( Crockford et al., 2005 ; Ko et al., 2009 ; Kühn et Gallinat, 2014 ; Voon et al., 2014 ).
Les études d'imagerie cérébrale portant sur le désir dans le contexte de la toxicomanie et des addictions comportementales ont mis en évidence des modifications fonctionnelles du cortex préfrontal (CPF) et des circuits de récompense sous-corticaux chez les sujets souffrant de ces troubles ( Goldstein et Volkow, 2011 ). Ces études ont notamment identifié le rôle clé du CPF dans l'addiction, à la fois par sa régulation des régions limbiques de la récompense et par son implication dans les aspects motivationnels de la consommation répétée de substances et des comportements compulsifs. Le dysfonctionnement du CPF entraîne des troubles de l'inhibition de la réponse et de l'attribution de la saillance, comme l'attribution d'une saillance excessive et inappropriée à un stimulus addictif, tel qu'observé dans la consommation de substances et les comportements addictifs, ainsi qu'une diminution du désir pour les stimuli gratifiants habituels ( Goldman-Rakic et Leung, 2002 ; Goldstein et Volkow, 2011 ).
Conformément à ces résultats, une étude de neuroimagerie sur les comportements sexuels problématiques (CSP) suggère que les personnes atteintes de CSP présentent un désir sexuel subjectif plus élevé que les sujets témoins sains et que ce désir accru est associé à différents schémas de réponses neuronales dans le réseau fonctionnel cortico-striato-amygdalien antérieur dorsal ( Voon et al., 2014 ). Dans une étude portant sur la structure cérébrale et la connectivité fonctionnelle, Kühn et Gallinat (2014) ont démontré qu'une exposition fréquente à la pornographie est associée à des altérations de la structure et du fonctionnement cérébraux dans les régions du cortex préfrontal et pourrait engendrer une tendance à rechercher des contenus sexuels nouveaux et plus extrêmes.
Ces études fournissent la preuve qu'un désir accru et les anomalies fonctionnelles impliquées dans le désir sont également impliqués dans le PHB, même si le comportement lui-même n'induit pas d'effets neurotoxiques.
Malheureusement, les données empiriques sur les réponses neuronales associées au désir sexuel chez les personnes atteintes de PHB sont insuffisantes. Les études antérieures sur les mécanismes cérébraux sous-jacents au traitement du désir sexuel chez ces personnes ont utilisé des paradigmes de blocs conventionnels lors d'imagerie par résonance magnétique fonctionnelle (IRMf) et une exposition relativement prolongée à des stimuli érotiques. Dans les études sur le désir sexuel, la durée de présentation semble importante d'un point de vue méthodologique et en raison des différences de traitement de l'information ( Bühler et al., 2008 ). Dans les protocoles en blocs, la durée de présentation des stimuli est prolongée et l'occurrence de stimuli continus au sein d'un bloc est parfaitement prévisible ( Zarahn et al., 1997 ). Par conséquent, ces protocoles activent probablement des zones associées aux processus cognitifs, tels que l'attention soutenue, le contrôle descendant et l'inhibition de l'excitation sexuelle . Ceci pourrait entraîner une diminution de l'implication émotionnelle et, de ce fait, modifier l'activité neuronale sous-jacente ( Schafer et al., 2005 ). Sur le plan méthodologique, les plans liés aux événements sont inférieurs aux plans en blocs conventionnels pour détecter les zones cérébrales activées, tandis qu'ils sont supérieurs pour estimer la fonction de réponse hémodynamique ( Birn et al., 2002 ).
Par conséquent, les objectifs de cette étude étaient de:
(1) reproduisent les résultats comportementaux antérieurs d'un désir sexuel accru chez les personnes atteintes de PHB,
(2) identifier les modifications de la fonction cérébrale dans les régions connues pour être associées à un désir accru, et
(3) comprennent les différences dans les réponses hémodynamiques de ces régions cérébrales au fil du temps chez les personnes atteintes de PHB en utilisant l’IRMf événementielle.
Nous avons émis l’hypothèse que les individus avec PHB sont plus susceptibles de manifester un plus grand désir sexuel que les témoins sains et que les régions du cerveau, telles que le circuit PFC et les circuits de récompense sous-corticaux, montrent une activité et des réponses hémodynamiques altérées par rapport aux témoins sains.
Méthodologie
Participants
La présente étude a inclus 23 participants hétérosexuels de sexe masculin dans le groupe PHB (âge moyen = 26.12 ans, écart-type [ET] = 4.11 ans) et 22 participants hétérosexuels de sexe masculin dans le groupe témoin (âge moyen = 26.27 ans, ET = 3.39 ans) . Environ 70 participants potentiels ont été recrutés dans des centres de traitement des comportements sexuels problématiques et lors de réunions des Sex Addiction Anonymous . Les critères d'inclusion étaient basés sur les critères diagnostiques du PHB d'études antérieures (tableau S1 ; Carnes et al., 2010 ; Kafka, 2010 ). Les critères d'exclusion étaient les suivants : âge supérieur à 45 ans ou inférieur à 18 ans ; trouble psychiatrique grave, tel qu'un trouble lié à l'usage d'alcool, un trouble du jeu pathologique, un trouble dépressif majeur, un trouble bipolaire ou un trouble obsessionnel-compulsif ; prise de médicaments en cours ; antécédents de traumatisme crânien grave ; homosexualité ; casier judiciaire. ou une contre-indication à l'imagerie (par exemple, la présence d'un implant métallique, un astigmatisme sévère ou une claustrophobie). Les cliniciens ont mené des entretiens cliniques avec tous les sujets potentiels, et un groupe final de 23 hommes répondant aux critères d'inclusion et exempt de critères d'exclusion a été sélectionné pour le groupe PHB. Pour le groupe témoin, 22 participants présentant des caractéristiques démographiques (âge, sexe, niveau d'études et niveau de revenu) similaires à celles du groupe PHB ont été sélectionnés. Tous les participants ont donné leur consentement éclairé par écrit après avoir reçu des explications sur le contenu de la présente étude. Le comité d'éthique de l'Université nationale de Chungnam a approuvé les procédures expérimentales et de consentement (numéro d'approbation : 201309-SB-003-01). Tous les participants ont reçu une compensation financière de 150 dollars pour leur participation.
Instruments de mesure
Les participants ont rempli un questionnaire portant sur leurs caractéristiques démographiques et leurs activités sexuelles des six derniers mois, ainsi que des échelles standardisées telles que l'échelle d'impulsivité de Barratt (BIS-11 ; Patton et al., 1995 ), le questionnaire d'agressivité de Buss-Perry ( Buss et Perry, 1992 ), l'inventaire de dépression de Beck ( Beck et al., 1996 ), l'inventaire d'anxiété de Beck ( Beck et al., 1996 ), le test de dépistage de la dépendance sexuelle (SAST-R ; Carnes et al., 2010 ) et l'inventaire des comportements hypersexuels (HBI ; Reid et al., 2011 ; Tableau 1 ). Les questions relatives aux comportements sexuels portaient sur l'âge du premier rapport sexuel et le statut relationnel sexuel actuel. Une relation sexuelle exclusive était définie comme une relation dans laquelle deux personnes seulement ont des rapports sexuels exclusivement entre elles. Une relation sexuelle non exclusive était définie comme le maintien de relations sexuelles multiples avec plusieurs partenaires différents, sans qu'aucune intimité ne soit établie au sein de la relation.
TABLEAU 1
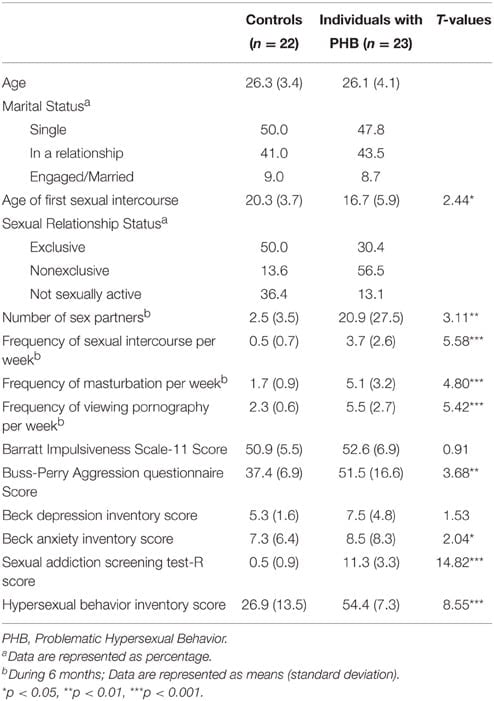
Tableau 1. Caractéristiques des sujets.
Les questions relatives aux caractéristiques liées à l'activité sexuelle portaient notamment sur la fréquence des rapports sexuels par semaine, la fréquence de la masturbation par semaine, la fréquence de la consultation de pornographie par semaine et le nombre total de partenaires sexuels au cours des six derniers mois . De plus, les échelles SAST-R ( Carnes et al., 2010 ) et HBI ( Reid et al., 2011 ) ont été utilisées pour évaluer le degré d'hypersexualité chez les participants. L'échelle SAST-R comprend 20 questions conçues pour évaluer le degré d'addiction sexuelle. Le score varie de 0 à 20 points, un score élevé indiquant une addiction sexuelle plus sévère. L'échelle HBI comprend 19 questions et le score varie de 19 à 95. Un score total de 53 ou plus est indicatif d'un trouble d'hypersexualité . Les coefficients de cohérence interne (α de Cronbach) du SAST-R et du HBI sont respectivement de 0.91 et 0.96 ( Carnes et al., 2010 ; Reid et al., 2011 ).
Stimuli expérimental et paradigme expérimental
Une étude préliminaire a été menée auprès de 130 hommes aux fonctions sexuelles normales, n'ayant pas participé à l'expérience d'IRMf, afin de sélectionner les stimuli sexuels et non sexuels pour l'étude IRMf (Fichier S1). Les stimuli visuels étaient composés de 20 photos issues du Système international d'images affectives (6 photos ; Lang et al., 2008 ) et de sites Internet (14 photos). Les stimuli sexuels étaient des photographies représentant des femmes nues et des scènes d'activité sexuelle. Par ailleurs, 20 photos n'induisant aucun désir sexuel ont été choisies comme stimuli non sexuels. Leur niveau d'agrément a été comparé à celui des stimuli sexuels. Les stimuli non sexuels présentaient des scènes très excitantes, telles que des sports nautiques, la célébration d'une victoire et du ski. Ces stimuli ont été sélectionnés afin d'identifier l'activité cérébrale spécifiquement liée au désir sexuel, en éliminant l'activité résultant de sentiments de plaisir et d'une excitation générale.
Dans le cadre du protocole expérimental d'IRMf, de brèves instructions concernant l'expérience ont été données pendant 6 secondes au début de celle-ci, suivies de la présentation aléatoire de stimuli sexuels ou non sexuels pendant 5 secondes chacun . Chaque intervalle inter-stimulus était de 7 à 13 secondes (10 secondes en moyenne) afin de permettre au participant de revenir à son état de base. Pour maintenir l'attention des participants sur les stimuli, il leur était demandé d'appuyer sur le bouton de réponse lorsqu'une cible inattendue apparaissait pendant environ 500 ms, et ce, 12 fois au total au cours de chaque intervalle. La durée totale de l'expérience était de 8 minutes et 48 secondes (Figure 1 ).
FIGURE 1
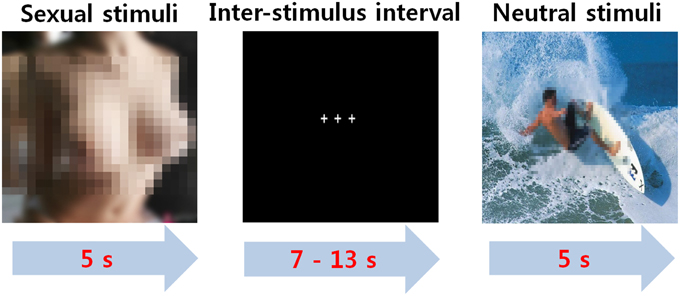
Figure 1. Le paradigme événementiel du désir sexuel.
Après avoir terminé l'expérience d'IRMf, les participants ont regardé les mêmes stimuli que ceux présentés dans l'expérience d'IRMf, et ils ont dû répondre aux trois questions suivantes pour une évaluation psychologique.
Premièrement, on leur a demandé de répondre «oui» ou «non» lorsqu'on leur a demandé s'ils ressentaient un désir sexuel lorsqu'ils visualisaient chaque stimulus.
Deuxièmement, ils devaient évaluer leur désir sexuel sur une échelle de Likert sur cinq points allant de 1 (moins intense) à 5 (plus intense).
Troisièmement, les évaluations subjectives des participants sur les dimensions de la valence et de l'excitation de chaque stimulus ont été déterminées selon une échelle de Likert en sept points.
Les évaluations ont été formulées sur deux dimensions. La valence, positive ou négative, variait de très négative chez 1 à très positive chez 7, et l'excitation émotionnelle variait du calme chez 1 à l'excité / éveil chez 7. Enfin, les participants étaient tenus de signaler toute émotion qu’ils éprouvaient en plus du désir sexuel au cours de leur exposition à chaque stimulus.
Acquisition de l'image
L'acquisition des images a été réalisée à l'aide d'un scanner à résonance magnétique Philips 3.0 T (Philips Healthcare, Best, Pays-Bas). Une méthode d'acquisition IRMf par imagerie écho-planaire mono-coup [variables d'acquisition : temps de répétition (TR) = 2 000 ms, temps d'écho (TE) = 28 ms, épaisseur de coupe = 5 mm sans intervalle, matrice = 64 × 64, champ de vision (FOV) = 24 × 24 cm, angle de basculement = 80° et résolution dans le plan = 3.75 mm] a été utilisée pour acquérir 35 coupes continues d'images BOLD (Blood Oxygen Level-Dependent). Des images anatomiques pondérées T1 ont été obtenues avec une séquence de récupération d'inversion atténuée par le fluide 3D ( TR = 280, TE = 14 ms, angle de basculement = 60°, FOV = 24 × 24 cm, matrice = 256 × 256 et épaisseur de coupe = 4 mm).
Analyses statistiques
Afin d'étudier les réponses comportementales et neuronales uniquement liées au désir sexuel, les données d'imagerie et psychologiques relatives aux trois images induisant d'autres émotions, telles que le dégoût, la colère ou la surprise, ont été exclues de l'analyse. Des tests t de Student indépendants ont été réalisés sur les fréquences et les intensités du désir sexuel entre les deux groupes à l'aide du logiciel SPSS 22 (IBM Corporation, Armonk, NY, États-Unis). La fréquence du désir sexuel correspond au nombre de stimuli ayant suscité un désir chez chaque participant parmi les 20 stimuli sexuels présentés, et l'intensité de l'excitation sexuelle correspond au niveau moyen de désir sexuel subjectif pour les 20 images érotiques.
SPM8 (département Wellcome de l’imagerie neuroscientifique, Londres, Royaume-Uni) a été utilisé pour analyser les données IRMf. Au stade du prétraitement, l’acquisition des images IRM a été réalisée dans l’ordre suivant: correction du calage des tranches pour l’acquisition entrelacée, correction du mouvement et normalisation spatiale sur un modèle standard fourni par l’Institut neurologique de Montréal (INM). Ensuite, les images normalisées ont été lissées avec un noyau gaussien 8-mm.
Après le prétraitement, des matrices de conception à deux conditions (condition sexuelle et condition non sexuelle) ont été créées pour chaque participant afin d'identifier les zones d'activation liées au désir sexuel. Des analyses individuelles de premier niveau comparant la condition sexuelle à la condition non sexuelle ont été réalisées à l'aide d'un modèle à effets aléatoires, et des images moyennes ont été générées pour chaque sujet. Des tests t de Student à un échantillon ont été effectués sur ces images moyennes afin d'évaluer les effets de groupe significatifs au sein de chaque groupe, dans les images de contraste issues des analyses individuelles. Des tests t de Student à deux échantillons ont été réalisés pour identifier les différences de réponses cérébrales entre les deux groupes dans la condition sexuelle par rapport à la condition non sexuelle. De plus, des analyses de corrélation ont été menées uniquement dans le groupe PHB afin de déterminer les régions d'activation corrélées à la sévérité de l'hypersexualité selon l'échelle SAST-R. La variance des scores du questionnaire étant probablement trop faible pour révéler des corrélations plus significatives dans le groupe contrôle, aucune analyse de corrélation n'a été effectuée dans ce groupe. Les valeurs p inférieures à 0.05 (taux de faux positifs corrigé, taille du cluster ≥ 20) ou à 0.001 (non corrigé, taille du cluster ≥ 20) ont été considérées comme significatives pour l'activité cérébrale, ces seuils étant généralement acceptés dans les études d'IRMf. Les coordonnées de tous les voxels activés sont présentées sous forme de coordonnées MNI dans les tableaux 3 et 4.
Le pourcentage de variation du signal a été extrait des régions d'intérêt (ROI) à partir des résultats des analyses intergroupes et de corrélation [thalamus bilatéral, cortex préfrontal dorsolatéral droit (DLPFC), noyau caudé gauche, gyrus supramarginal droit et gyrus cingulaire antérieur dorsal droit] avec MarsBaR ( http://www.sourceforge.net/projects/marsbar ). Les ROI ont été créées en plaçant une sphère de 5 mm de diamètre autour des coordonnées indiquées dans les tableaux 3 et 4. Afin d'examiner les caractéristiques temporelles des réponses hémodynamiques, l'évolution temporelle du signal BOLD a également été extraite des ROI pendant la présentation de chaque stimulus sexuel (12 s au total ; 5 s et 7 s ensuite) pour tous les participants . Les évolutions temporelles ont ensuite été moyennées pour chaque groupe.
En tant que test de corrélation de suivi pour calculer le coefficient de corrélation, les relations entre les scores sur le SAST-R et le HBI et les changements de signal en pourcentage dans les ROI basés sur les résultats de l'analyse de corrélation (Tableau 4 ) ont été analysées dans le groupe PHB avec SPSS 22.
Résultats
Résultats des évaluations psychologiques
Parmi les sujets témoins sains de 20, seuls deux ont signalé d'autres émotions que l'excitation sexuelle en réponse aux trois stimuli sexuels. Un participant du groupe témoin a signalé que deux stimuli sexuels parmi les stimuli sexuels 20 induisaient le dégoût et la colère, tandis que l’autre participant du groupe témoin a évalué cette surprise par une image sexuelle. Les trois images sexuelles induisant des sentiments autres que l'excitation sexuelle ont été exclues de l'analyse des données.
Un indépendant t-test n'a révélé aucune différence de groupe dans les dimensions de la valence et de l'excitation en réponse à des signaux sexuels [valence: t(43) = 0.14, p> 0.05, Cohen d = 0.042; éveil: t(43) = 0.30,p> 0.05, Cohen d = 0.089]. En outre, le pourcentage de stimuli sexuels parmi les photos érotiques 20 évoquant le désir sexuelcomment le groupe PHB ressentait le désir sexuel plus fréquemment que le groupe témoin pendant l'exposition à un stimulant sexuelje [t(43) = 3.23, p <0.01, Cohen d = 0.960]. TL'intensité de l'excitation sexuelle a montré que le groupe PHB avait une excitation sexuelle plus intense que le groupe témoin en réponse à des photos sexuellement stimulantes. [t(43) = 14.3, p <0.001, Cohen d = 4.26]. Les résultats des évaluations psychologiques sont présentés au tableau. 2.
TABLEAU 2
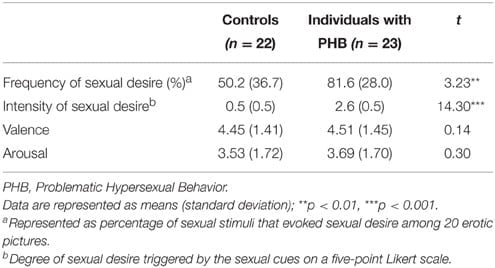
Tableau 2. Résultats de l'évaluation psychologique.
Résultats IRMf
Dans le groupe PHB, une activation a été observée dans les gyri frontaux moyens et inférieurs bilatéraux (aire de Brodmann 9), le cunéus/précunéus (aires de Brodmann 7, 18 et 19), le striatum, le thalamus et les gyri cingulaires (aires de Brodmann 24 et 32) en réponse à des stimuli sexuels comparativement à des stimuli non sexuels. Dans le groupe contrôle, une activation a été observée dans les gyri frontaux moyens et inférieurs bilatéraux (aire de Brodmann 9), le cunéus/précunéus (aires de Brodmann 7, 18 et 19), le striatum, le thalamus et le gyrus cingulaire gauche (aire de Brodmann 24) (taux de fausses découvertes corrigé, p < 0.05).
Dans l'analyse intergroupes, le groupe PHB a présenté une activation plus importante du cortex cingulaire antérieur dorsal droit (dACC ; BA 24 et 32), des thalamus bilatéraux, du noyau caudé gauche, du cortex préfrontal dorsolatéral droit (BA 9 et 46) et du gyrus supramarginal droit (BA 40) par rapport au groupe contrôle lors de l'exposition à des stimuli sexuels comparativement à des stimuli non sexuels. Aucune région cérébrale du groupe contrôle n'a présenté une activation plus importante que celle du groupe PHB . Les coordonnées des voxels activés sont présentées sous forme de coordonnées MNI dans les tableaux 3 et 4 . La figure 2 montre les pourcentages de changement de signal dans les groupes contrôle et PHB dans chaque condition expérimentale (c'est-à-dire les conditions sexuelles et non sexuelles) pour les ROI sélectionnées, et la figure 3 affiche la série temporelle moyenne pour chaque groupe des pourcentages de changement de signal à chaque point temporel dans les ROI pendant la présentation de chaque stimulus sexuel (total de 12 s ; 5 et 7 s par la suite) sur la base des résultats de l'analyse intergroupes.
TABLEAU 3
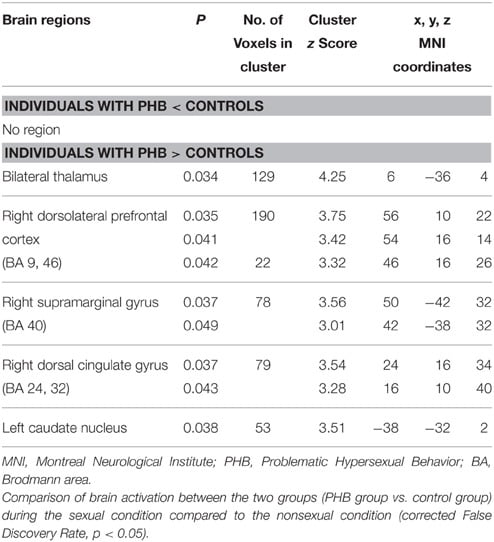
Tableau 3. Régions cérébrales identifiées par l'analyse de groupe.
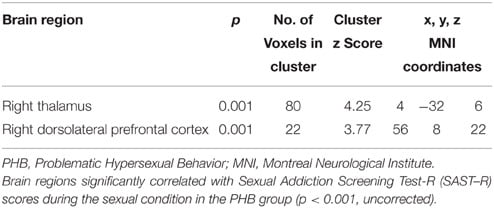
Tableau 4. Régions cérébrales identifiées dans l'analyse de corrélation dans le groupe PHB lors de l'exposition à des stimuli sexuels.
FIGURE 2
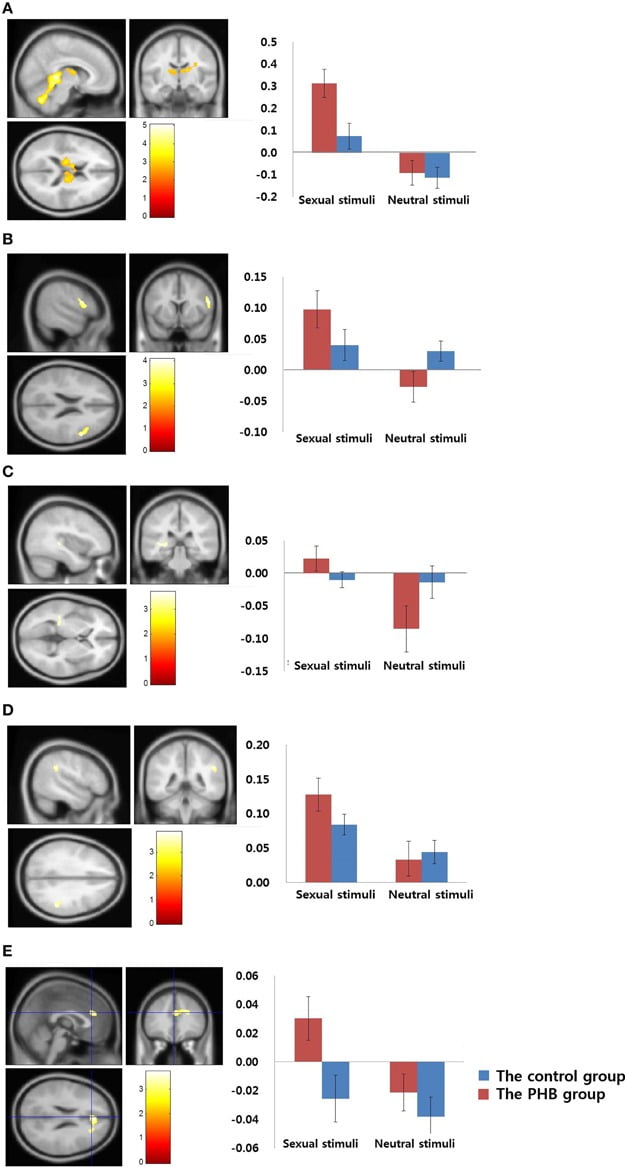
Figure 2. Résultats de l'analyse intergroupe. (A) Thalamus bilatéral (coordonnée MNI; x = 6, y = −36, z = 4) (B) Cortex préfrontal dorsolatéral droit (coordonné par l 'INM;x = 56, y = 10, z = 22) (C) Noyau caudé gauche (coordonnée MNI; x = −38, y = −32, z = 2)(D) Gyrus supramarginal droit (coordonné par l 'INM; x = 50, y = −42, z = 32) (E) Gyrus cingulaire antérieur dorsal droit (coordonnées MNI; x = 24, y = −16, z = 34). Résultats de la comparaison de l'activation des stimuli sexuels moins les stimuli non sexuels entre le groupe PHB et le groupe témoin (p <0.05, taux de fausses découvertes, corrigé). Le groupe témoin et le groupe PHB sont représentés respectivement en bleu et en rouge. L'axe des y montre le pourcentage de changement de signal et les barres d'erreur représentent l'erreur standard de la moyenne.
FIGURE 3
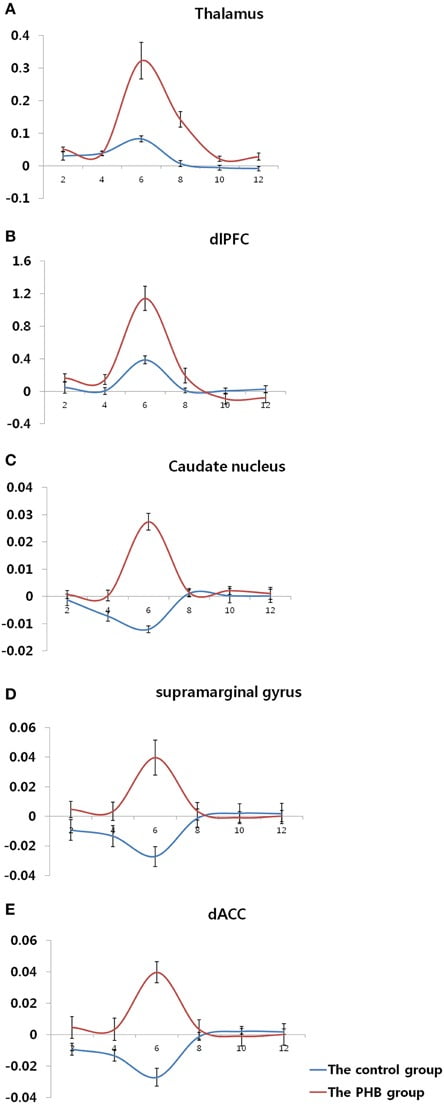
Figure 3. Évolution temporelle des réponses hémodynamiques dans chaque région d'intérêt.(A) Thalamus bilatéral (coordonnée MNI; x = 6, y = −36, z = 4) (B) Cortex préfrontal dorsolatéral droit (coordonné par l 'INM; x = 56, y = 10, z = 22) (C) Noyau caudé gauche (coordonnée MNI; x = −38, y = −32, z = 2) (D) Gyrus supramarginal droit (coordonné par l 'INM; x = 50, y = −42, z = 32) (E) Gyrus cingulaire antérieur dorsal droit (coordonnées MNI; x = 24, y = −16, z = 34). L'axe des y et l'axe des x affichent le pourcentage de changement de signal et l'heure (s), respectivement, et les barres d'erreur représentent l'erreur standard de la moyenne.
L’analyse de corrélation des régions associées au score SAST-R a montré que le thalamus droit et le DLPFC (BA 9) étaient corrélés aux scores SAST-R (p <0.001, non corrigé) dans le groupe PHB lors de l'exposition à des stimuli sexuels, comme indiqué dans le tableau 4. TLes résultats de l'analyse de suivi ont montré que le pourcentage de changement de signal extrait du thalamus droit et du DLPFC était en corrélation significative avec la gravité de l'hypersexualité, comme le montre la figure 4. Le pourcentage de changement de signal entre le thalamus droit et la DLPFC droite était en corrélation positive avec les scores SAST-R du groupe PHB lors d’une exposition à des stimuli sexuels (thalamus droit).: r = 0.74, n = 23, p <0.01; DLPFC droit: r = 0.63, n = 23, p <0.01). De plus, les pourcentages de changement de signal dans le DLPFC droit et le thalamus droit étaient positivement liés aux scores HBI dans le groupe PHB (thalamus droit: r = 0.65, n = 23, p <0.01; DLPFC droit: r = 0.53, n = 23, p <0.01), comme le montre la figure 4.
FIGURE 4
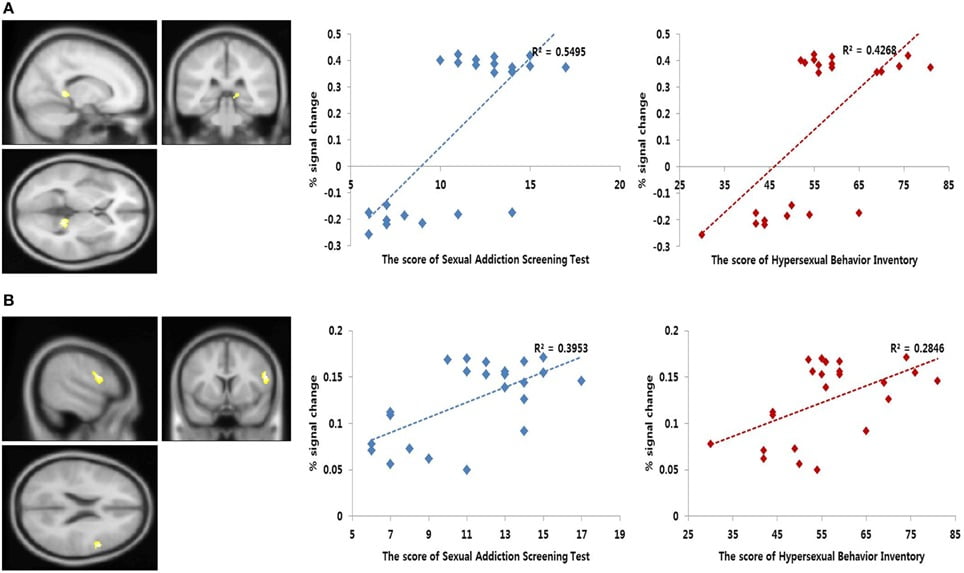
Figure 4. Résultats de l'analyse de corrélation . À gauche, analyse de corrélation par imagerie par résonance magnétique fonctionnelle (IRMf). Régions présentant une corrélation significative entre l'activité cérébrale lors du désir sexuel et les scores du test de dépistage de la dépendance sexuelle révisé (SAST-R) ( p < 0.001, non corrigé). À droite, relation linéaire entre les variations de signal en pourcentage extraites de chaque zone et les scores de gravité de la dépendance sexuelle [c.-à-d. les scores SAST-R et HBI (Hypersexual Behavior Inventory)]. L'axe des abscisses représente les scores de gravité de la dépendance sexuelle et l'axe des ordonnées, les variations de signal en pourcentage. (A) Thalamus bilatéral (coordonnées MNI : x = 4, y = −32, z = 6). (B) Cortex préfrontal dorsolatéral droit (coordonnées MNI : x = 56, y = 8, z = 22).
Discussions
La présente étude a examiné s'il existait une différence dans les niveaux de désir sexuel entre les individus présentant un trouble du comportement sexuel hypoactif (TCH) et les sujets témoins sains, et, le cas échéant, si cette différence était liée à des altérations fonctionnelles des substrats neuronaux du désir sexuel chez ces individus. Conformément aux prédictions, le groupe TCH a présenté des niveaux de désir sexuel significativement plus élevés et une activation altérée du cortex préfrontal et des régions sous-corticales par rapport aux témoins. Ces résultats suggèrent que les modifications fonctionnelles des circuits neuronaux qui sous-tendent le désir de comportements sexuels induit par des stimuli sont similaires à celles observées en réponse à la présentation de stimuli chez les individus souffrant de toxicomanie ou de dépendance comportementale ( Garavan et al., 2000 ; Tapert et al., 2003 ; Crockford et al., 2005 ; Franklin et al., 2007 ; Ko et al., 2009 ; McClernon et al., 2009 ). Voon et al. (2014) ont rapporté un désir anormal et des modifications fonctionnelles dans les régions associées à un désir accru chez les individus présentant un comportement sexuel compulsif. Nous avons reproduit et étendu ces résultats en étudiant les séries temporelles de l'activation pendant les 12 secondes totales dans les zones associées au désir sexuel.
Conformément à nos hypothèses, l'analyse des résultats des évaluations psychologiques a montré que le groupe PHB présentait un désir sexuel plus fréquent que le groupe témoin lors de l'exposition à des stimuli sexuels, ce qui suggère un seuil de désir sexuel plus bas chez ce groupe . Lorsque le désir sexuel était induit, le groupe PHB manifestait une intensité supérieure à celle du groupe témoin. Ce résultat concorde avec les travaux antérieurs menés auprès d'individus du groupe PHB ( Laier et al., 2013 ; Laier et Brand, 2014 ; Voon et al., 2014 ), et démontre notamment que le désir de pornographie pourrait jouer un rôle clé dans la cyberdépendance sexuelle.
Les résultats concernant les réponses cérébrales aux stimuli sexuels concordent avec les données de neuroimagerie antérieures, qui indiquaient une activité dans les régions cérébrales impliquées dans le désir ou la motivation/l'anticipation sexuelle, ainsi que dans le plaisir ou l'excitation/la consommation sexuelle, lorsque tous les participants étaient exposés à des stimuli sexuels ( Georgiadis et Kringelbach, 2012 ). Les comparaisons de groupes par imagerie cérébrale ont révélé une activation altérée dans le cortex préfrontal dorsolatéral droit (BA 9) et dans des régions sous-corticales, notamment le cortex cingulaire antérieur dorsal droit (BA 24 et 32), le noyau caudé gauche, le gyrus supramarginal droit (BA 40) et le thalamus droit. Ces altérations pourraient être associées aux caractéristiques comportementales du groupe PHB. Outre l'activation cérébrale, nous avons examiné l'évolution temporelle des réponses hémodynamiques dans ces régions pendant et après l'excitation du désir sexuel.
Parmi ces régions, le noyau caudé gauche, le cortex cingulaire antérieur droit (aires de Brodmann 24 et 32) et le cortex préfrontal dorsolatéral droit sont supposés être associés à la composante motivationnelle du désir sexuel. L'implication du noyau caudé dans la motivation et le traitement de la récompense pourrait expliquer sa réponse aux stimuli sexuels ( Delgado, 2007 ). Le striatum dorsal est activé lors de l'anticipation d'une récompense ( Delgado, 2007 ), ce qui reflète possiblement le désir associé à cette anticipation. Dans une étude portant sur les réponses neuronales liées à la consommation de pornographie, une activation fréquente due à l'exposition à la pornographie pourrait entraîner une diminution de l'activité du striatum, notamment du noyau caudé, chez les sujets témoins sains ( Kühn et Gallinat, 2014 ). Cependant, dans la présente étude, une activation plus importante du noyau caudé a été observée dans le groupe PHB, bien que ce groupe ait consommé de la pornographie plus fréquemment . Ces différences entre les résultats de la présente étude et ceux de Kühn et Gallinat (2014) pourraient s'expliquer par la différence de population étudiée. En effet, contrairement à l'étude précédente menée auprès d'hommes adultes en bonne santé, notre étude a porté sur des individus souffrant de PHB (problèmes de sexualité non sexuelle). De plus en plus de données suggèrent que le noyau caudé joue un rôle important dans l'apprentissage des habitudes stimulus-réponse et le maintien des comportements addictifs ( Vanderschuren et Everitt, 2005 ). L'activation du noyau caudé observée dans cette étude pourrait indiquer que la réactivité aux stimuli sexuels s'établit après une exposition répétée à l'expérience sexuelle.
On sait que la dACC est liée aux mécanismes de motivation du désir sexuel (Redouté et al., 2000; Arnow et al., 2002; Hamann et al., 2004; Ferretti et al., 2005; Ponseti et al., 2006; Paul et al., 2008). Nos découvertes sur l'activation de la DACC suggèrent qu'elle joue un rôle dans le désir sexuel. Ces résultats sont similaires à ceux d'une étude sur l'activité neuronale liée au désir chez des sujets présentant des comportements sexuels compulsifs. (Voon et al., 2014). De plus, on sait que la dACC joue un rôle important dans le traitement initial du comportement orienté vers un objectif en assurant la surveillance des conflits entre le besoin d’expression comportementale et la suppression de ce désir (Devinsky et al., 1995; Arnow et al., 2002;Karama et al., 2002; Moulier et al., 2006; Safron et al., 2007). Sur le plan neuroanatomique, les projets dACC au DLPFC et au lobe pariétal (Devinsky et al., 1995; Pizzagalli et al., 2001). Dans cette étude, l'activation de la dACC dans le groupe PHB pourrait refléter un conflit interne entre le besoin d'exprimer les impulsions sexuelles sous forme d'actions et le besoin de supprimer les impulsions dues à des facteurs situationnels lors de la présentation de stimuli sexuels.
L'activation du gyrus supramarginal est associée à une attention accrue portée aux cibles perçues comme des signaux sexuels ( Redouté et al., 2000 ; Stoléru et al., 2012 ). Des études antérieures ont suggéré que cette attention accrue aux stimuli sexuels joue un rôle important dans le maintien du désir sexuel ( Barlow, 1986 ; Janssen et Everaerd, 1993 ) et est liée à la recherche de sensations sexuelles ( Kagerer et al., 2014 ). Dans la présente étude, l'activation supramarginale pourrait refléter l'attention plus soutenue portée par les sujets PHB aux stimuli sexuels, ce qui pourrait expliquer les niveaux de désir sexuel plus élevés observés comparativement au groupe témoin.
Parmi les régions cérébrales significativement activées dans les résultats intergroupes, le cortex préfrontal dorsolatéral (DLPFC) et le thalamus étaient directement corrélés à la sévérité de l'addiction sexuelle chez les sujets souffrant d'hyperactivité génitale. Nous avons observé une activation thalamique plus importante, ce qui concorde avec les résultats d'études antérieures sur l'excitation sexuelle ( Redouté et al., 2000 ; Moulier et al., 2006 ). Selon des études antérieures sur le désir sexuel, l'activation du thalamus est liée aux réponses physiologiques (par exemple, la disponibilité à l'activité sexuelle) induites par le désir sexuel et est positivement corrélée à l'érection pénienne ( MacLean et Ploog, 1962 ; Redouté et al., 2000 ; Moulier et al., 2006 ). De manière intéressante, nous avons également constaté une activation hémodynamique plus importante et plus étendue au niveau du thalamus comparativement aux sujets témoins. Cette réponse hémodynamique plus importante et plus étendue pourrait indiquer une excitation sexuelle plus intense et prolongée chez les individus souffrant d'hyperactivité génitale.
À l'instar des résultats d'études sur l'activité neuronale chez les personnes dépendantes lors de la stimulation du désir par des stimuli, nous avons observé une altération de la fonction du cortex préfrontal (CPF) dans le groupe PHB. Le CPF joue un rôle crucial dans la planification future et la mémoire de travail ( Bonson et al., 2002 ). Sur le plan neuroanatomique, le CPF est interconnecté à diverses régions, notamment le cortex cingulaire antérieur dorsal (dACC), le noyau caudé et le lobe pariétal ( Devinsky et al., 1995 ; Pizzagalli et al., 2001 ; Goldman-Rakic et Leung, 2002 ). Des études antérieures sur l'addiction ont démontré qu'un dysfonctionnement de ce réseau, notamment du cortex préfrontal (CPF), est lié à la régulation par le CPF des régions limbiques de la récompense et à son implication dans les fonctions exécutives supérieures, telles que le contrôle de soi, l'attribution de la saillance et la conscience ( Goldman-Rakic et Leung, 2002 ; Feil et al., 2010 ; Goldstein et Volkow, 2011 ; Kühn et Gallinat, 2014 ). Ces études ont en particulier identifié le dysfonctionnement du cortex préfrontal dorsolatéral (CPDL) comme une altération de l'attribution de la saillance, entraînant des symptômes tels qu'une sensibilité anormalement accrue aux stimuli addictifs (comme la consommation de substances et les comportements addictifs) et une diminution de l'intérêt pour les stimuli normalement gratifiants ( Goldman-Rakic et Leung, 2002 ; Goldstein et Volkow, 2011 ). Dans la présente étude, l'activation plus importante du CPD observée dans le groupe PHB par rapport au groupe témoin pourrait refléter une attribution excessive de la saillance aux stimuli sexuels.
En résumé, le groupe PHB a présenté un désir sexuel accru, associé à une activité cérébrale altérée. Ces résultats suggèrent que le groupe PHB pourrait accorder une attention excessive aux stimuli sexuels et développer une réponse automatique, la réponse conditionnée à ces stimuli n'ayant pu être correctement modulée. Les limites de cette étude sont les suivantes : premièrement, les sujets étaient d'origine asiatique ; deuxièmement, l'étude portait uniquement sur des hommes hétérosexuels, et des études ultérieures incluant des femmes et des hommes homosexuels permettraient de mieux comprendre le PHB ; les sujets PHB présentant des troubles mentaux concomitants n'ont pas été inclus dans cette étude, ce qui garantit l'étude des dysfonctionnements neuronaux uniquement liés au PHB. Cependant, selon une étude de Weiss (2004) , 28 % des hommes atteints de PHB souffrent de dépression majeure. Ces facteurs limitent la généralisation des résultats à l'ensemble de la population. Enfin, les deux groupes pourraient avoir différé en termes de conscience de soi et/ou de sensibilité émotionnelle en raison du traitement administré aux participants PHB. Nous avons tenté de réduire les différences entre les groupes contrôle et PHB en les appariant selon d'importantes variables démographiques, telles que l'âge, le niveau d'études et la latéralité, à des fins de comparaison, et en appliquant des critères d'exclusion stricts, comme la présence de troubles psychiatriques et la prise actuelle de médicaments psychotropes, aux deux groupes. Nous prévoyons ensuite d'examiner comment les variables liées à la durée ou au type de traitement influencent les réponses émotionnelles, notamment aux stimuli sexuels, des personnes atteintes de PHB.
Malgré ces limites, les résultats de cette étude contribuent de manière significative à la littérature et ont des implications importantes pour les recherches futures. Nous avons identifié des régions spécifiques du cerveau directement associées au désir sexuel et aux changements temporels dans les activités de ces régions chez les sujets atteints de PHB. Comme les études d'imagerie cérébrale sur la dépendance aux substances et au comportement, le PHB était lié à des changements fonctionnels dans les PFC et les zones sous-corticales, même sans la neurotoxicité des médicaments. Nos résultats sont donc utiles pour caractériser les comportements et les mécanismes neuronaux associés des individus atteints de PHB, et vont au-delà de la description des caractéristiques comme dans les études précédentes.
Financement
Ces travaux ont bénéficié du soutien de l'Institut coréen des sciences fondamentales (n ° E35600) et du fonds de recherche de l'Université nationale 2014 Chungnam.
Déclaration de conflit d'intérêts
Les auteurs déclarent que la recherche a été menée en l'absence de toute relation commerciale ou financière pouvant être interprétée comme un conflit d'intérêts potentiel.
Remerciements
Les auteurs souhaitent remercier le Korea Basic Science Institute pour avoir permis la réalisation de cette étude au département du Centre d'imagerie humaine à l'aide du scanner 3T MRI (Phillips).
Matériel complémentaire
Les documents complémentaires relatifs à cet article sont disponibles en ligne à l'adresse suivante : http://journal.frontiersin.org/article/10.3389/fnbeh.2015.00321
Références
Association américaine de psychiatrie (2013). Manuel diagnostique et statistique des troubles mentaux, 5e édition . Arlington, VA : American Psychiatric Publishing.
Arnow, BA, Desmond, JE, Banner, LL, Glover, GH, Solomon, A., Polan, ML, et al. (2002). Activation cérébrale et excitation sexuelle chez des hommes hétérosexuels en bonne santé. Brain 125, 1014–1023. doi : 10.1093/brain/awf108
Barlow, DH (1986). Causes des dysfonctions sexuelles : rôle de l’anxiété et des interférences cognitives. J. Consult. Clin. Psychol . 54, 140–148. doi : 10.1037/0022-006X.54.2.140
Beck, AT, Steer, RA et Brown, GK (1996). Inventaire de dépression de Beck-II . San Antonio, TX : Psychological Corporation.
Birn, RM, Cox, RW et Bandettini, PA (2002). Détection versus estimation en IRMf événementielle : choix du moment optimal de stimulation. Neuroimage 15, 252–264. doi : 10.1006/nimg.2001.0964
Black, DW (2000). Épidémiologie et phénoménologie des comportements sexuels compulsifs. CNS Spectr. 5, 26–72. doi : 10.1017/S1092852900012645
Bonson, KR, Grant, SJ, Contoreggi, CS, Links, JM, Metcalfe, J., Weyl, HL, et al. (2002). Systèmes neuronaux et envie de cocaïne induite par des stimuli. Neuropsychopharmacology 26, 376–386. doi : 10.1016/S0893-133X(01)00371-2
Bühler, M., Vollstädt-Klein, S., Klemen, J. et Smolka, MN (2008). L’influence de la présentation de stimuli érotiques sur les schémas d’activation cérébrale : comparaison entre les protocoles IRMf événementiels et les protocoles IRMf par blocs. Behav. Brain Funct. 4:30. doi : 10.1186/1744-9081-4-30
Buss, AH et Perry, M. (1992). Le questionnaire sur l'agression. J. Pers. Soc. Psychol. 63, 452–459. doi : 10.1037/0022-3514.63.3.452
Carnes, P. (2013). Contrairement à l'amour : Aider le toxicomane sexuel . Center City, MN : Hazelden Publishing.
Carnes, P., Green, B. et Carnes, S. (2010). Identique et pourtant différent : recentrer le test de dépistage de la dépendance sexuelle (SAST) pour tenir compte de l’orientation et du genre. Sex. Addict. Compuls. 17, 7–30. doi : 10.1080/10720161003604087
Carnes, PJ (2001). Sortir de l'ombre : comprendre la dépendance sexuelle . Center City, MN : Hazelden Publishing.
Coleman, E. (1992). Votre patient souffre-t-il d'un comportement sexuel compulsif ? Psychiatr. Ann. 22, 320–325. doi : 10.3928/0048-5713-19920601-09
Crockford, DN, Goodyear, B., Edwards, J., Quickfall, J. et el-Guebaly, N. (2005). Activité cérébrale induite par des stimuli chez les joueurs pathologiques. Biol. Psychiatry 58, 787–795. doi : 10.1016/j.biopsych.2005.04.037
Delgado, MR (2007). Réponses liées à la récompense dans le striatum humain. Ann. NY Acad. Sci. 1104, 70–88. doi : 10.1196/annals.1390.002
Devinsky, O., Morrell, MJ et Vogt, BA (1995). Contributions du cortex cingulaire antérieur au comportement. Brain 118, 279–306. doi : 10.1093/brain/118.1.279
Feil, J., Sheppard, D., Fitzgerald, PB, Yücel, M., Lubman, DI et Bradshaw, JL (2010). Addiction, recherche compulsive de drogue et rôle des mécanismes frontostriataux dans la régulation du contrôle inhibiteur. Neurosci. Biobehav. Rev. 35, 248–275. doi : 10.1016/j.neubiorev.2010.03.001
Ferretti, A., Caulo, M., Del Gratta, C., Di Matteo, R., Merla, A., Montorsi, F. et al. (2005). Dynamique de l'excitation sexuelle masculine : composantes distinctes de l'activation cérébrale révélées par l'IRMf. Neuroimage 26, 1086-1096. est ce que je: 10.1016/j.neuroimage.2005.03.025
Franklin, TR, Wang, Z., Wang, J., Sciortino, N., Harper, D., Li, Y., et al. (2007). Activation limbique en réponse aux stimuli liés au tabagisme, indépendamment du sevrage nicotinique : une étude d’IRMf de perfusion. Neuropsychopharmacology 32, 2301–2309. doi : 10.1038/sj.npp.1301371
Garavan, H., Pankiewicz, J., Bloom, A., Cho, J.K., Sperry, L., Ross, T.J., et al. (2000). Besoin impérieux de cocaïne induit par des stimuli : spécificité neuroanatomique chez les consommateurs de drogue et en fonction des stimuli liés à la drogue. Am. J. Psychiatry 157, 1789–1798. doi : 10.1176/appi.ajp.157.11.1789
Georgiadis, JR et Kringelbach, ML (2012). Le cycle de la réponse sexuelle humaine : données d’imagerie cérébrale établissant un lien entre le sexe et d’autres plaisirs. Prog. Neurobiol. 98, 49–81. doi : 10.1016/j.pneurobio.2012.05.004
Goldman-Rakic, PS et Leung, HC (2002). « Architecture fonctionnelle du cortex préfrontal dorsolatéral chez les singes et les humains », dans Principles of Frontal Lobe Function , éd. DT Stuss et RT Knight (New York, NY : Oxford University Press), 85–95.
Goldstein, RZ et Volkow, ND (2011). Dysfonctionnement du cortex préfrontal dans la dépendance : résultats de neuroimagerie et implications cliniques. Nat. Rev. Neurosci. 12, 652–669. doi : 10.1038/nrn3119
Goodman, A. (1993). Diagnostic et traitement de la dépendance sexuelle. J. Sex Marital Ther. 19, 225–251. doi : 10.1080/00926239308404908
Goodman, A. (2001). Qu'y a-t-il dans un nom ? Terminologie pour désigner un syndrome de comportement sexuel compulsif. Sexual Addict. Compuls. 8, 191–213. doi : 10.1080/107201601753459919
Hamann, S., Herman, RA, Nolan, CL et Wallen, K. (2004). Différences entre les hommes et les femmes dans la réponse de l'amygdale aux stimuli sexuels visuels. Nat. Neurosci . 7, 411–416. doi : 10.1038/nn1208
Janssen, E., et Everaerd, W. (1993). Déterminants de l'excitation sexuelle masculine. Ann. Rev. Sex Res. 4, 211–245. doi : 10.1080/10532528.1993.10559888
Kafka, M.P. (2010). Trouble hypersexuel : un diagnostic proposé pour le DSM-5. Arch. Sex. Behav. 39, 377–400. doi : 10.1007/s10508-009-9574-7
Kagerer, S., Wehrum, S., Klucken, T., Walter, B., Vaitl, D. et Stark, R. (2014). Le sexe attire : étude des différences individuelles dans le biais attentionnel envers les stimuli sexuels. PLoS ONE 9 : e107795. doi : 10.1371/journal.pone.0107795
Karama, S., Lecours, AR, Leroux, JM, Bourgouin, P., Beaudoin, G., Joubert, S., et al. (2002). Zones d'activation cérébrale chez les hommes et les femmes lors du visionnage d'extraits de films érotiques. Hum. Brain Mapp , 16, 1–13. doi : 10.1002/hbm.10014
Kim, M., et Kwak, JB (2011). Dépendance au cybersexe chez les jeunes à l'ère des médias numériques. J. Humanit. 29, 283–326.
Ko, CH, Liu, GC, Hsiao, S., Yen, JY, Yang, MJ, Lin, WC, et al. (2009). Activités cérébrales associées à l'envie de jouer dans la dépendance aux jeux vidéo en ligne. J. Psychiatr. Res. 43, 739–747. doi : 10.1016/j.jpsychires.2008.09.012
Kor, A., Fogel, Y., Reid, RC et Potenza, MN (2013). L’hypersexualité doit-elle être classée comme une addiction ? Sex. Addict. Compuls. 20, 27–47. doi : 10.1080/10720162.2013.768132
Kühn, S., et Gallinat, J. (2014). Structure cérébrale et connectivité fonctionnelle associées à la consommation de pornographie : le cerveau sous l’effet du porno. JAMA Psychiatry 71, 827–834. doi : 10.1001/jamapsychiatry.2014.93
Kuzma, JM et Black, DW (2008). Épidémiologie, prévalence et histoire naturelle des comportements sexuels compulsifs. Psychiatr. Clin. North Am. 31, 603–611. doi : 10.1016/j.psc.2008.06.005
Laier, C., et Brand, M. (2014). Données empiriques et considérations théoriques sur les facteurs contribuant à la cyberdépendance sexuelle : une approche cognitivo-comportementale. Sex. Addict. Compuls. 21, 305–321. doi : 10.1080/10720162.2014.970722
Laier, C., Pawlikowski, M., Pekal, J., Schulte, FP et Brand, M. (2013). Dépendance au cybersexe : l’excitation sexuelle ressentie lors du visionnage de pornographie, et non lors de contacts sexuels réels, fait toute la différence. J. Behav. Addict. 2, 100–107. doi : 10.1556/JBA.2.2013.002
Lang, PJ, Bradley, MM et Cuthbert, BN (2008). Système international d'images affectives (IAPS) : Évaluations affectives des images et manuel d'instructions . Rapport technique A-8. Gainesville, FL : Université de Floride.
MacLean, PD et Ploog, DW (1962). Représentation cérébrale de l'érection pénienne. J. Neurophysiol. 25, 29–55.
McClernon, FJ, Kozink, RV, Lutz, AM et Rose, JE (2009). L’abstinence tabagique de 24 heures potentialise l’activation BOLD en IRMf en réponse aux stimuli liés au tabagisme dans le cortex cérébral et le striatum dorsal. Psychopharmacology 204, 25–35. doi : 10.1007/s00213-008-1436-9
Moulier, V., Mouras, H., Pélégrini-Issac, M., Glutron, D., Rouxel, R., Grandjean, B., et al. (2006). Corrélats neuroanatomiques de l'érection pénienne évoquée par des stimuli photographiques chez les hommes humains. Neuroimage 33, 689-699. est ce que je: 10.1016/j.neuroimage.2006.06.037
Patton, JH, Stanford, MS et Barratt, ES (1995). Structure factorielle de l'échelle d'impulsivité de Barratt. J. Clin. Psychol. 51, 768–774.
Paul, T., Schiffer, B., Zwarg, T., Krüger, T.H., Karama, S., Schedlowski, M., et al. (2008). Réponse cérébrale aux stimuli sexuels visuels chez les hommes hétérosexuels et homosexuels. Hum. Brain Mapp. 29, 726–735. doi : 10.1002/hbm.20435
Pizzagalli, D., Pascual-Marqui, RD, Nitschke, JB, Oakes, TR, Larson, CL, Abercrombie, HC, et al. (2001). L’activité du cortex cingulaire antérieur comme prédicteur du degré de réponse au traitement dans la dépression majeure : données issues de l’analyse par tomographie électrique cérébrale. Am. J. Psychiatry 158, 405–415. doi : 10.1176/appi.ajp.158.3.405
Ponseti, J., Bosinski, HA, Wolff, S., Peller, M., Jansen, O., Mehdorn, HM, et al. (2006). Un endophénotype fonctionnel de l'orientation sexuelle chez l'humain. Neuroimage 33, 825–833. doi : 10.1016/j.neuroimage.2006.08.002
Redouté, J., Stoléru, S., Grégoire, MC, Costes, N., Cinotti, L., Lavenne, F., et al. (2000). Traitement cérébral des stimuli sexuels visuels chez les hommes. Hum. Carte du cerveau. 11, 162-177. est ce que je: 10.1002/1097-0193(200011)11:3<162::AID-HBM30>3.0.CO;2-A
Reid, RC, Garos, S. et Carpenter, BN (2011). Fiabilité, validité et développement psychométrique de l’Inventaire des comportements hypersexuels auprès d’un échantillon de patients masculins en consultation externe. Sex. Addict. Compuls. 18, 30–51. doi : 10.1080/10720162.2011.555709
Safron, A., Barch, B., Bailey, JM, Gitelman, DR, Parrish, TB et Reber, PJ (2007). Corrélats neuronaux de l'excitation sexuelle chez les hommes homosexuels et hétérosexuels. Behav. Neurosci. 121, 237–248. doi : 10.1037/0735-7044.121.2.237
Schafer, A., Schienle, A. et Vaitl, D. (2005). Le type et la conception du stimulus influencent les réponses hémodynamiques aux stimuli visuels suscitant le dégoût et la peur. Int. J. Psychophysiol. 57, 53–59. doi : 10.1016/j.ijpsycho.2005.01.011
Schneider, JP et Schneider, B. (1991). Sexe, mensonges et pardon : des couples témoignent de leur guérison de la dépendance sexuelle. Center City, MN : Hazeldon Publishing.
Seegers, JA (2003). Prévalence des symptômes de dépendance sexuelle sur les campus universitaires. Sex. Addict. Compuls. 10, 247–258. doi : 10.1080/713775413
Stoléru, S., Fonteille, V., Cornélis, C., Joyal, C. et Moulier, V. (2012). Études de neuroimagerie fonctionnelle de l'excitation sexuelle et de l'orgasme chez les hommes et les femmes en bonne santé : revue et méta-analyse. Neurosci. Biobehav. Rev. 36, 1481–1509. doi : 10.1016/j.neubiorev.2012.03.006
Tapert, SF, Cheung, EH, Brown, GG, Frank, LR, Paulus, MP, Schweinsburg, AD, et al. (2003). Réponse neuronale aux stimuli alcooliques chez les adolescents présentant un trouble lié à l'usage d'alcool. Arch. Gen. Psychiatry 60, 727–735. doi : 10.1001/archpsyc.60.7.727
Vanderschuren, LJ et Everitt, BJ (2005). Mécanismes comportementaux et neuronaux de la recherche compulsive de drogue. Eur. J. Pharmacol. 526, 77–88. doi : 10.1016/j.ejphar.2005.09.037
Voon, V., Mole, TB, Banca, P., Porter, L., Morris, L., Mitchell, S., et al. (2014). Corrélats neuronaux de la réactivité aux stimuli sexuels chez les individus avec et sans comportements sexuels compulsifs. PLoS ONE 9:e102419. doi: 10.1371/journal.pone.0102419
Weiss, D. (2004). Prévalence de la dépression chez les hommes souffrant d'addiction sexuelle aux États-Unis. Sex. Addict. Compulsivity 11, 57–69. doi : 10.1080/10720160490458247
Zarahn, E., Aguirre, G. et D'Esposito, M. (1997). Conception expérimentale par essais pour l'IRMf. Neuroimage 6, 122–138. doi : 10.1006/nimg.1997.0279
Mots clés: comportement hypersexuel problématique, désir sexuel, imagerie par résonance magnétique fonctionnelle, cortex préfrontal dorsolatéral, réponse hémodynamique
Citation : Seok JW et Sohn JH (2015) Substrats neuronaux du désir sexuel chez les individus présentant un comportement hypersexuel problématique. Front. Behav. Neurosci . 9:321. doi : 10.3389/fnbeh.2015.00321
Reçu le 18 juin 2015; Accepté: 10 novembre 2015;
Publié: 30 novembre 2015.
Édité par:
Morten L. Kringelbach , Université d'Oxford, Royaume-Uni et Université d'Aarhus, Danemark, Royaume-Uni
Commenté par:
Matthias Brand, Université Duisburg-Essen, Allemagne
Janniko Georgiadis, Centre médical universitaire de Groningue, Pays-Bas
© 2015 Seok et Sohn. Cet article est en libre accès et distribué selon les termes de la licence Creative Commons Attribution (CC BY) . Son utilisation, sa distribution ou sa reproduction sur d’autres supports sont autorisées, à condition que les auteurs ou le concédant de licence soient mentionnés et que la publication originale dans cette revue soit citée, conformément aux usages académiques. Toute utilisation, distribution ou reproduction non conforme à ces conditions est interdite.
*Correspondance : Jin-Hun Sohn, [email protected]