ಕಾಮೆಂಟ್ಗಳು: ನಂತರದ ಅಧ್ಯಯನಗಳು ಡೆಲ್ಟಾಫೊಸ್ಬಿ ಮಾದಕವಸ್ತು ಮತ್ತು ನಡವಳಿಕೆಯ ಚಟಗಳಿಗೆ ಸಾಮಾನ್ಯ ಆಣ್ವಿಕ ಸ್ವಿಚ್ ಎಂದು ಬಹಿರಂಗಪಡಿಸುತ್ತದೆ. ಇದು ಪ್ರತಿಲೇಖನ ಅಂಶವಾಗಿದೆ ಅಂದರೆ ಇದರರ್ಥ ಯಾವ ಜೀನ್ಗಳನ್ನು ಆನ್ ಅಥವಾ ಆಫ್ ಮಾಡಲಾಗಿದೆ ಎಂಬುದರ ಮೇಲೆ ಅದು ಪರಿಣಾಮ ಬೀರುತ್ತದೆ. ಬೇರೆಡೆ ಹೇಳಿದಂತೆ, ವ್ಯಸನಕಾರಿ drugs ಷಧಗಳು ಸಾಮಾನ್ಯ ಕಾರ್ಯವಿಧಾನಗಳನ್ನು ಅಪಹರಿಸುತ್ತವೆ. ಅದಕ್ಕಾಗಿಯೇ ವರ್ತನೆಯ ಚಟಗಳು ಅಸ್ತಿತ್ವದಲ್ಲಿಲ್ಲ ಎಂದು ಸೂಚಿಸುವುದು ಸಿಲ್ಲಿ.
ಪ್ರೊಕ್ ನ್ಯಾಟ್ ಅಕಾಡ್ ಸೈ ಯುಎಸ್ ಎ. ಎಕ್ಸ್ನ್ಯುಎಮ್ಎಕ್ಸ್ ಸೆಪ್ಟೆಂಬರ್ ಎಕ್ಸ್ಎನ್ಯುಎಂಎಕ್ಸ್; 2001 (25): 98 - 20.
doi: 10.1073 / pnas.191352698.
ಎರಿಕ್ ಜೆ. ನೆಸ್ಲರ್ *, ಮೈಕೆಲ್ ಬ್ಯಾರಟ್, ಮತ್ತು ಡೇವಿಡ್ ಡಬ್ಲ್ಯೂ. ಸೆಲ್ಫ್
ಸೈಕಿಯಾಟ್ರಿ ಮತ್ತು ಸೆಂಟರ್ ಫಾರ್ ಬೇಸಿಕ್ ನ್ಯೂರೋಸೈನ್ಸ್, ಟೆಕ್ಸಾಸ್ ವಿಶ್ವವಿದ್ಯಾಲಯದ ನೈ w ತ್ಯ ವೈದ್ಯಕೀಯ ಕೇಂದ್ರ, 5323 ಹ್ಯಾರಿ ಹೈನ್ಸ್ ಬೌಲೆವರ್ಡ್, ಡಲ್ಲಾಸ್, TX 75390-9070
ಅಮೂರ್ತ
ಮಾದಕ ವ್ಯಸನವನ್ನು ನಿರೂಪಿಸುವ ಕೆಲವು ನಡವಳಿಕೆಯ ಅಸಹಜತೆಗಳ ದೀರ್ಘಾಯುಷ್ಯವು ನರ ಜೀನ್ ಅಭಿವ್ಯಕ್ತಿಯ ನಿಯಂತ್ರಣವು ದುರುಪಯೋಗದ ಔಷಧಿಗಳು ವ್ಯಸನದ ಸ್ಥಿತಿಯನ್ನು ಉಂಟುಮಾಡುವ ಪ್ರಕ್ರಿಯೆಯಲ್ಲಿ ಭಾಗಿಯಾಗಿರಬಹುದು ಎಂದು ಸೂಚಿಸಿದೆ. ಹೆಚ್ಚುತ್ತಿರುವ ಪುರಾವೆಗಳು ಟ್ರಾನ್ಸ್ಕ್ರಿಪ್ಷನ್ ಅಂಶ ΔFosB ಒಂದು ಕಾರ್ಯವಿಧಾನವನ್ನು ಪ್ರತಿನಿಧಿಸುತ್ತದೆ ಎಂದು ಸೂಚಿಸುತ್ತದೆ, ಇದರ ಮೂಲಕ ದುರುಪಯೋಗದ ಔಷಧಗಳು ವ್ಯಸನ ಫಿನೋಟೈಪ್ಗೆ ಕಾರಣವಾಗುವ ಮೆದುಳಿನಲ್ಲಿ ತುಲನಾತ್ಮಕವಾಗಿ ಸ್ಥಿರವಾದ ಬದಲಾವಣೆಗಳನ್ನು ಉಂಟುಮಾಡುತ್ತವೆ. ಟ್ರಾನ್ಸ್ಕ್ರಿಪ್ಷನ್ ಅಂಶಗಳ FosB ಕುಟುಂಬದ ಸದಸ್ಯರಾದ ΔFosB , ಅನೇಕ ರೀತಿಯ ದುರುಪಯೋಗದ ಔಷಧಿಗಳ ಪುನರಾವರ್ತಿತ ಆಡಳಿತದ ನಂತರ ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ಮತ್ತು ಡಾರ್ಸಲ್ ಸ್ಟ್ರೈಟಮ್ (ವ್ಯಸನಕ್ಕೆ ಮುಖ್ಯವಾದ ಮೆದುಳಿನ ಪ್ರದೇಶಗಳು) ನ ನ್ಯೂರಾನ್ಗಳ ಉಪವಿಭಾಗದೊಳಗೆ ಸಂಗ್ರಹಗೊಳ್ಳುತ್ತದೆ. ಕಂಪಲ್ಸಿವ್ ರನ್ನಿಂಗ್ ನಂತರ ΔFosB ನ ಇದೇ ರೀತಿಯ ಶೇಖರಣೆ ಸಂಭವಿಸುತ್ತದೆ, ಇದು ΔFosB ಅನೇಕ ರೀತಿಯ ಕಂಪಲ್ಸಿವ್ ನಡವಳಿಕೆಗಳಿಗೆ ಪ್ರತಿಕ್ರಿಯೆಯಾಗಿ ಸಂಗ್ರಹವಾಗಬಹುದು ಎಂದು ಸೂಚಿಸುತ್ತದೆ . ಮುಖ್ಯವಾಗಿ, ΔFosB ಅದರ ಅಸಾಧಾರಣ ಸ್ಥಿರತೆಯಿಂದಾಗಿ ತುಲನಾತ್ಮಕವಾಗಿ ದೀರ್ಘಕಾಲದವರೆಗೆ ನ್ಯೂರಾನ್ಗಳಲ್ಲಿ ಮುಂದುವರಿಯುತ್ತದೆ. ಆದ್ದರಿಂದ, ΔFosB ಒಂದು ಆಣ್ವಿಕ ಕಾರ್ಯವಿಧಾನವನ್ನು ಪ್ರತಿನಿಧಿಸುತ್ತದೆ, ಅದು ಔಷಧದ ಮಾನ್ಯತೆ ನಿಂತ ನಂತರ ದೀರ್ಘಕಾಲದವರೆಗೆ ಮುಂದುವರಿಯುವ ಜೀನ್ ಅಭಿವ್ಯಕ್ತಿಯಲ್ಲಿ ಬದಲಾವಣೆಗಳನ್ನು ಪ್ರಾರಂಭಿಸಬಹುದು ಮತ್ತು ಉಳಿಸಿಕೊಳ್ಳಬಹುದು . ΔFosB ಅಥವಾ ಪ್ರೋಟೀನ್ನ ಪ್ರಬಲ ನಕಾರಾತ್ಮಕ ಪ್ರತಿಬಂಧಕವನ್ನು ಅತಿಯಾಗಿ ವ್ಯಕ್ತಪಡಿಸುವ ಪ್ರೇರಿತ ಟ್ರಾನ್ಸ್ಜೆನಿಕ್ ಇಲಿಗಳಲ್ಲಿನ ಅಧ್ಯಯನಗಳು ΔFosB ದುರುಪಯೋಗದ ಔಷಧಿಗಳ ವರ್ತನೆಯ ಪರಿಣಾಮಗಳಿಗೆ ಹೆಚ್ಚಿದ ಸಂವೇದನೆಯನ್ನು ಉಂಟುಮಾಡುತ್ತದೆ ಮತ್ತು ಬಹುಶಃ, ಹೆಚ್ಚಿದ ಮಾದಕವಸ್ತು ಬೇಡಿಕೆಯ ನಡವಳಿಕೆಯನ್ನು ಉಂಟುಮಾಡುತ್ತದೆ ಎಂಬುದಕ್ಕೆ ನೇರ ಪುರಾವೆಗಳನ್ನು ಒದಗಿಸುತ್ತದೆ. ಈ ಕೆಲಸವು ΔFosB ನಿರಂತರವಾದ "ಆಣ್ವಿಕ ಸ್ವಿಚ್" ಆಗಿ ಕಾರ್ಯನಿರ್ವಹಿಸುತ್ತದೆ ಎಂಬ ದೃಷ್ಟಿಕೋನವನ್ನು ಬೆಂಬಲಿಸುತ್ತದೆ, ಇದು ಕ್ರಮೇಣ ತೀವ್ರವಾದ ಔಷಧ ಪ್ರತಿಕ್ರಿಯೆಗಳನ್ನು ತುಲನಾತ್ಮಕವಾಗಿ ಸ್ಥಿರವಾದ ರೂಪಾಂತರಗಳಾಗಿ ಪರಿವರ್ತಿಸುತ್ತದೆ, ಇದು ವ್ಯಸನಕ್ಕೆ ಆಧಾರವಾಗಿರುವ ದೀರ್ಘಕಾಲೀನ ನರ ಮತ್ತು ನಡವಳಿಕೆಯ ಪ್ಲಾಸ್ಟಿಟಿಗೆ ಕೊಡುಗೆ ನೀಡುತ್ತದೆ.
ವ್ಯಸನದ ಸಂಶೋಧನೆಯು ವ್ಯಸನವನ್ನು ನಿರೂಪಿಸುವ ನಡವಳಿಕೆಯ ವೈಪರೀತ್ಯಗಳಿಗೆ ಕಾರಣವಾಗುವಂತೆ ದುರುಪಯೋಗದ drugs ಷಧಗಳು ಮೆದುಳನ್ನು ಬದಲಾಯಿಸುವ ಸಂಕೀರ್ಣ ಮಾರ್ಗಗಳನ್ನು ಅರ್ಥಮಾಡಿಕೊಳ್ಳುವುದರ ಮೇಲೆ ಕೇಂದ್ರೀಕರಿಸಿದೆ. ಈ ಕ್ಷೇತ್ರದಲ್ಲಿನ ಒಂದು ನಿರ್ಣಾಯಕ ಸವಾಲು ಎಂದರೆ, ದೀರ್ಘಕಾಲೀನವಾಗಿರುವ ವರ್ತನೆಯ ವೈಪರೀತ್ಯಗಳಿಗೆ ಕಾರಣವಾಗಲು ಮೆದುಳಿನಲ್ಲಿ ತುಲನಾತ್ಮಕವಾಗಿ ಸ್ಥಿರವಾದ drug ಷಧ-ಪ್ರೇರಿತ ಬದಲಾವಣೆಗಳನ್ನು ಗುರುತಿಸುವುದು. ಉದಾಹರಣೆಗೆ, ಮಾನವ ವ್ಯಸನಿ ವರ್ಷಗಟ್ಟಲೆ ಇಂದ್ರಿಯನಿಗ್ರಹದ ನಂತರವೂ ಮರುಕಳಿಸುವ ಅಪಾಯವನ್ನು ಹೆಚ್ಚಿಸಬಹುದು.
ಈ ನಡವಳಿಕೆಯ ಅಸಹಜತೆಗಳ ಸ್ಥಿರತೆಯು, ಜೀನ್ ಅಭಿವ್ಯಕ್ತಿಯಲ್ಲಿನ ಬದಲಾವಣೆಗಳ ಮೂಲಕ, ಕನಿಷ್ಠ ಭಾಗಶಃ, ಅವುಗಳನ್ನು ಮಧ್ಯಸ್ಥಿಕೆ ವಹಿಸಬಹುದು ಎಂಬ ಸಲಹೆಗೆ ಕಾರಣವಾಗಿದೆ (1–3). ಈ ದೃಷ್ಟಿಕೋನದ ಪ್ರಕಾರ, ದುರುಪಯೋಗದ ಔಷಧಕ್ಕೆ ಪದೇ ಪದೇ ಒಡ್ಡಿಕೊಳ್ಳುವುದರಿಂದ ಔಷಧಕ್ಕೆ ಸೂಕ್ಷ್ಮವಾಗಿರುವ ಮೆದುಳಿನಲ್ಲಿರುವ ನಿರ್ದಿಷ್ಟ ಸಿನಾಪ್ಸ್ಗಳಲ್ಲಿ ಪ್ರಸರಣವನ್ನು ಪದೇ ಪದೇ ತೊಂದರೆಗೊಳಿಸುತ್ತದೆ. ಅಂತಹ ಗೊಂದಲಗಳು ಅಂತಿಮವಾಗಿ ಅಂತರ್ಜೀವಕೋಶದ ಮೆಸೆಂಜರ್ ಕ್ಯಾಸ್ಕೇಡ್ಗಳ ಮೂಲಕ ನ್ಯೂಕ್ಲಿಯಸ್ಗೆ ಸಂಕೇತಿಸುತ್ತವೆ, ಅಲ್ಲಿ ಅವು ಮೊದಲು ನಿರ್ದಿಷ್ಟ ಜೀನ್ಗಳ ಅಭಿವ್ಯಕ್ತಿಯಲ್ಲಿ ಬದಲಾವಣೆಗಳನ್ನು ಪ್ರಾರಂಭಿಸುತ್ತವೆ ಮತ್ತು ನಂತರ ನಿರ್ವಹಿಸುತ್ತವೆ. ಸಿಗ್ನಲ್ ಟ್ರಾನ್ಸ್ಡಕ್ಷನ್ ಮಾರ್ಗಗಳು ಜೀನ್ ಅಭಿವ್ಯಕ್ತಿಯ ಮೇಲೆ ಪ್ರಭಾವ ಬೀರುವ ಪ್ರಾಥಮಿಕ ಕಾರ್ಯವಿಧಾನವೆಂದರೆ ಪ್ರತಿಲೇಖನ ಅಂಶಗಳ ನಿಯಂತ್ರಣ, ಜೀನ್ಗಳ ನಿಯಂತ್ರಕ ಪ್ರದೇಶಗಳಿಗೆ ಬಂಧಿಸುವ ಮತ್ತು ಅವುಗಳ ಪ್ರತಿಲೇಖನವನ್ನು ಮಾರ್ಪಡಿಸುವ ಪ್ರೋಟೀನ್ಗಳು.
ಆದ್ದರಿಂದ, ವ್ಯಸನ ಸಂಶೋಧನೆಯ ಒಂದು ಗುರಿಯೆಂದರೆ, ದುರುಪಯೋಗದ drugs ಷಧಿಗಳ ದೀರ್ಘಕಾಲದ ಆಡಳಿತದ ನಂತರ ವ್ಯಸನದಲ್ಲಿ ಸಿಲುಕಿರುವ ಮೆದುಳಿನ ಪ್ರದೇಶಗಳಲ್ಲಿ ಬದಲಾದ ಪ್ರತಿಲೇಖನ ಅಂಶಗಳನ್ನು ಗುರುತಿಸುವುದು. ಕಳೆದ ಒಂದು ದಶಕದಲ್ಲಿ (1-6) ಇಂತಹ ಹಲವಾರು ಪ್ರತಿಲೇಖನ ಅಂಶಗಳನ್ನು ಗುರುತಿಸಲಾಗಿದೆ. ಈ ವಿಮರ್ಶೆಯ ಗಮನವು ΔFosB ಎಂಬ ಒಂದು ನಿರ್ದಿಷ್ಟ ಪ್ರತಿಲೇಖನ ಅಂಶದ ಮೇಲೆ ಇದೆ.
ಡ್ರಗ್ಸ್ ಆಫ್ ದುರುಪಯೋಗದಿಂದ osFosB ಯ ಇಂಡಕ್ಷನ್
Os ಫಾಸ್ಬಿ ಜೀನ್ನಿಂದ ಎನ್ಕೋಡ್ ಮಾಡಲಾದ ಫಾಸ್ಬಿ, ಪ್ರತಿಲೇಖನ ಅಂಶಗಳ ಫೋಸ್ ಕುಟುಂಬದ ಸದಸ್ಯರಾಗಿದ್ದು, ಇದರಲ್ಲಿ ಸಿ-ಫಾಸ್, ಫಾಸ್ಬಿ, ಫ್ರ್ಯಾಕ್ಸ್ನಮ್ಎಕ್ಸ್ ಮತ್ತು ಫ್ರಾಕ್ಸ್ನ್ಯೂಮ್ಎಕ್ಸ್ (ಎಕ್ಸ್ಎನ್ಯುಎಂಎಕ್ಸ್) ಸಹ ಸೇರಿವೆ. ಈ ಫಾಸ್ ಫ್ಯಾಮಿಲಿ ಪ್ರೋಟೀನ್ಗಳು ಜೂನ್ ಫ್ಯಾಮಿಲಿ ಪ್ರೋಟೀನ್ಗಳೊಂದಿಗೆ (ಸಿ-ಜೂನ್, ಜುನ್ಬಿ, ಅಥವಾ ಜುಎನ್ಡಿ) ಸಕ್ರಿಯ ಎಪಿ-ಎಕ್ಸ್ನ್ಯೂಎಮ್ಎಕ್ಸ್ (ಆಕ್ಟಿವೇಟರ್ ಪ್ರೋಟೀನ್-ಎಕ್ಸ್ಎನ್ಯುಎಮ್ಎಕ್ಸ್) ಪ್ರತಿಲೇಖನ ಅಂಶಗಳನ್ನು ರೂಪಿಸಲು ಎಪಿ-ಎಕ್ಸ್ನ್ಯೂಎಮ್ಎಕ್ಸ್ ಸೈಟ್ಗಳಿಗೆ (ಒಮ್ಮತದ ಅನುಕ್ರಮ: ಟಿಜಿಎಸಿ / ಜಿಟಿಸಿಎ) ಅಸ್ತಿತ್ವದಲ್ಲಿವೆ. ಕೆಲವು ಜೀನ್ಗಳ ಪ್ರವರ್ತಕರು ಅವುಗಳ ಪ್ರತಿಲೇಖನವನ್ನು ನಿಯಂತ್ರಿಸಲು.
ದುರುಪಯೋಗದ ಅನೇಕ drugs ಷಧಿಗಳ (ಅಂಜೂರ. 1) (8-11) ತೀವ್ರ ಆಡಳಿತದ ನಂತರ ಈ ಫಾಸ್ ಕುಟುಂಬ ಪ್ರೋಟೀನ್ಗಳು ನಿರ್ದಿಷ್ಟ ಮೆದುಳಿನ ಪ್ರದೇಶಗಳಲ್ಲಿ ವೇಗವಾಗಿ ಮತ್ತು ಅಸ್ಥಿರವಾಗಿ ಪ್ರಚೋದಿಸಲ್ಪಡುತ್ತವೆ. ಪ್ರಮುಖ ಪ್ರದೇಶಗಳು ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ಮತ್ತು ಡಾರ್ಸಲ್ ಸ್ಟ್ರೈಟಮ್, ಅವು drugs ಷಧಿಗಳಿಗೆ ವರ್ತನೆಯ ಪ್ರತಿಕ್ರಿಯೆಗಳ ಪ್ರಮುಖ ಮಧ್ಯವರ್ತಿಗಳಾಗಿವೆ, ನಿರ್ದಿಷ್ಟವಾಗಿ, ಅವುಗಳ ಲಾಭದಾಯಕ ಮತ್ತು ಲೊಕೊಮೊಟರ್-ಸಕ್ರಿಯಗೊಳಿಸುವ ಪರಿಣಾಮಗಳು (12, 13). Protein ಷಧಿ ಆಡಳಿತದ ಕೆಲವೇ ಗಂಟೆಗಳಲ್ಲಿ ಈ ಪ್ರೋಟೀನ್ಗಳು ತಳದ ಮಟ್ಟಕ್ಕೆ ಮರಳುತ್ತವೆ.
ಚಿತ್ರ 1
ದುರುಪಯೋಗದ ಔಷಧಿಗಳಿಗೆ ಪ್ರತಿಕ್ರಿಯೆಯಾಗಿ ಇತರ Fos ಕುಟುಂಬದ ಪ್ರೋಟೀನ್ಗಳ ತ್ವರಿತ ಮತ್ತು ಅಸ್ಥಿರ ಪ್ರಚೋದನೆಯ ವಿರುದ್ಧ ΔFosB ನ ಕ್ರಮೇಣ ಶೇಖರಣೆಯನ್ನು ತೋರಿಸುವ ಯೋಜನೆ. (A) ಆಟೋರಾಡಿಯೋಗ್ರಾಮ್ ತೀವ್ರವಾದ ಪ್ರಚೋದನೆಯಿಂದ (ಒಂದೇ ಔಷಧಕ್ಕೆ ಒಡ್ಡಿಕೊಂಡ ನಂತರ 1-2 ಗಂಟೆಗಳು) ಮತ್ತು ದೀರ್ಘಕಾಲದ ಪ್ರಚೋದನೆಯಿಂದ (ಪುನರಾವರ್ತಿತ ಔಷಧಕ್ಕೆ ಒಡ್ಡಿಕೊಂಡ ನಂತರ 1 ದಿನ) ಈ ವಿವಿಧ ಪ್ರೋಟೀನ್ಗಳ ವಿಭಿನ್ನ ಪ್ರಚೋದನೆಯನ್ನು ವಿವರಿಸುತ್ತದೆ. (B) Fos-ತರಹದ ಪ್ರೋಟೀನ್ಗಳ ಹಲವಾರು ಅಲೆಗಳು [c-Fos (52- ರಿಂದ 58-kDa ಐಸೋಫಾರ್ಮ್ಗಳು), FosB (46- ರಿಂದ 50-kDa ಐಸೋಫಾರ್ಮ್ಗಳು), ΔFosB (33-kDa ಐಸೋಫಾರ್ಮ್), ಮತ್ತು Fra1 ಅಥವಾ Fra2 (40 kDa)] ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಗಳು ಮತ್ತು ಡಾರ್ಸಲ್ ಸ್ಟ್ರೈಟಲ್ ನ್ಯೂರಾನ್ಗಳಲ್ಲಿ ದುರುಪಯೋಗದ ಔಷಧದ ತೀವ್ರ ಆಡಳಿತದಿಂದ ಪ್ರಚೋದಿಸಲ್ಪಡುತ್ತವೆ. ΔFosB (35-37 kDa) ನ ಜೀವರಾಸಾಯನಿಕವಾಗಿ ಮಾರ್ಪಡಿಸಿದ ಐಸೋಫಾರ್ಮ್ಗಳು ಸಹ ಪ್ರೇರಿತವಾಗಿವೆ; ತೀವ್ರವಾದ ಔಷಧ ಆಡಳಿತದ ನಂತರ ಅವು (ಕಡಿಮೆ ಮಟ್ಟದಲ್ಲಿದ್ದರೂ) ಪ್ರೇರಿತವಾಗುತ್ತವೆ, ಆದರೆ ಅವುಗಳ ಸ್ಥಿರತೆಯಿಂದಾಗಿ ದೀರ್ಘಕಾಲದವರೆಗೆ ಮೆದುಳಿನಲ್ಲಿ ಇರುತ್ತವೆ. (ಸಿ) ಪುನರಾವರ್ತಿತ (ಉದಾ. ದಿನಕ್ಕೆ ಎರಡು ಬಾರಿ) ಔಷಧ ನೀಡುವಿಕೆಯೊಂದಿಗೆ, ಪ್ರತಿ ತೀವ್ರ ಪ್ರಚೋದನೆಯು ಸ್ಥಿರವಾದ ΔFosB ಐಸೋಫಾರ್ಮ್ಗಳ ಕಡಿಮೆ ಮಟ್ಟವನ್ನು ಪ್ರೇರೇಪಿಸುತ್ತದೆ, ಇದು ಪ್ರತಿ ತೀವ್ರ ಪ್ರಚೋದನೆಯಿಂದ ಪ್ರೇರಿತವಾದ ΔFosB ಅನ್ನು ಸೂಚಿಸುವ ಅತಿಕ್ರಮಿಸುವ ರೇಖೆಗಳ ಕೆಳಗಿನ ಗುಂಪಿನಿಂದ ಸೂಚಿಸಲ್ಪಡುತ್ತದೆ. ಇದರ ಫಲಿತಾಂಶವು ದೀರ್ಘಕಾಲದ ಚಿಕಿತ್ಸೆಯ ಅವಧಿಯಲ್ಲಿ ಪುನರಾವರ್ತಿತ ಪ್ರಚೋದಕಗಳೊಂದಿಗೆ ΔFosB ನ ಒಟ್ಟು ಮಟ್ಟದಲ್ಲಿ ಕ್ರಮೇಣ ಹೆಚ್ಚಳವಾಗಿದೆ, ಇದನ್ನು ಗ್ರಾಫ್ನಲ್ಲಿ ಹೆಚ್ಚುತ್ತಿರುವ ಹಂತದ ರೇಖೆಯಿಂದ ಸೂಚಿಸಲಾಗುತ್ತದೆ.
ದುರುಪಯೋಗದ ಔಷಧಿಗಳ ದೀರ್ಘಕಾಲದ ಆಡಳಿತದ ನಂತರ ಬಹಳ ವಿಭಿನ್ನ ಪ್ರತಿಕ್ರಿಯೆಗಳು ಕಂಡುಬರುತ್ತವೆ (ಚಿತ್ರ 1) . ಪುನರಾವರ್ತಿತ ಔಷಧ ಒಡ್ಡಿಕೆಯ ನಂತರ ΔFosB (ಆಣ್ವಿಕ ದ್ರವ್ಯರಾಶಿ 35–37 kDa) ನ ಜೀವರಾಸಾಯನಿಕವಾಗಿ ಮಾರ್ಪಡಿಸಿದ ಐಸೋಫಾರ್ಮ್ಗಳು ಅದೇ ಮೆದುಳಿನ ಪ್ರದೇಶಗಳಲ್ಲಿ ಸಂಗ್ರಹಗೊಳ್ಳುತ್ತವೆ, ಆದರೆ ಎಲ್ಲಾ ಇತರ Fos ಕುಟುಂಬ ಸದಸ್ಯರು ಸಹಿಷ್ಣುತೆಯನ್ನು ತೋರಿಸುತ್ತಾರೆ (ಅಂದರೆ, ಆರಂಭಿಕ ಔಷಧ ಒಡ್ಡುವಿಕೆಗಳೊಂದಿಗೆ ಹೋಲಿಸಿದರೆ ಕಡಿಮೆ ಪ್ರಚೋದನೆ). ಕೊಕೇನ್, ಮಾರ್ಫಿನ್, ಆಂಫೆಟಮೈನ್, ಆಲ್ಕೋಹಾಲ್, ನಿಕೋಟಿನ್ ಮತ್ತು ಫೆನ್ಸಿಕ್ಲಿಡಿನ್ ಇ (11, 14–18) ಗಾಗಿ ΔFosB ಯ ಅಂತಹ ಸಂಗ್ರಹಣೆಯನ್ನು ಗಮನಿಸಲಾಗಿದೆ . ಈ ಮೆದುಳಿನ ಪ್ರದೇಶಗಳಲ್ಲಿರುವ ಮಧ್ಯಮ ಸ್ಪೈನಿ ನ್ಯೂರಾನ್ಗಳ ಡೈನಾರ್ಫಿನ್/ವಸ್ತುವಿನ P- ಹೊಂದಿರುವ ಉಪವಿಭಾಗಕ್ಕೆ ಈ ಪ್ರಚೋದನೆಯು ಆಯ್ದವಾಗಿದೆ ಎಂಬುದಕ್ಕೆ ಕೆಲವು ಪುರಾವೆಗಳಿವೆ (15, 17), ಆದಾಗ್ಯೂ ಇದನ್ನು ಖಚಿತವಾಗಿ ಸ್ಥಾಪಿಸಲು ಹೆಚ್ಚಿನ ಕೆಲಸ ಬೇಕಾಗುತ್ತದೆ. ΔFosB ಯ 35- ರಿಂದ 37-kDa ಐಸೋಫಾರ್ಮ್ಗಳು ಈ ಮೆದುಳಿನ ಪ್ರದೇಶಗಳಲ್ಲಿ ಸಕ್ರಿಯ ಮತ್ತು ದೀರ್ಘಕಾಲೀನ AP-1 ಸಂಕೀರ್ಣವನ್ನು ರೂಪಿಸಲು ಪ್ರಧಾನವಾಗಿ JunD ಯೊಂದಿಗೆ ಡೈಮರೈಸ್ ಮಾಡುತ್ತವೆ (19, 20). ಈ ΔFosB ಐಸೋಫಾರ್ಮ್ಗಳು ಅವುಗಳ ಅಸಾಧಾರಣವಾದ ದೀರ್ಘ ಅರ್ಧ-ಜೀವಿತಾವಧಿಯಿಂದಾಗಿ (21) ದೀರ್ಘಕಾಲದ ಔಷಧಕ್ಕೆ ಒಡ್ಡಿಕೊಂಡಾಗ ಸಂಗ್ರಹವಾಗುತ್ತವೆ ಮತ್ತು ಆದ್ದರಿಂದ ಔಷಧ ಆಡಳಿತವನ್ನು ನಿಲ್ಲಿಸಿದ ನಂತರ ಕನಿಷ್ಠ ಹಲವಾರು ವಾರಗಳವರೆಗೆ ನರಕೋಶಗಳಲ್ಲಿ ಇರುತ್ತವೆ. ಈ ΔFosB ಐಸೋಫಾರ್ಮ್ಗಳು ತಕ್ಷಣದ ಆರಂಭಿಕ ಜೀನ್ನ (fosB) ಹೆಚ್ಚು ಸ್ಥಿರವಾದ ಉತ್ಪನ್ನಗಳಾಗಿವೆ ಎಂಬುದನ್ನು ಗಮನಿಸುವುದು ಆಸಕ್ತಿದಾಯಕವಾಗಿದೆ. ΔFosB ಐಸೋಫಾರ್ಮ್ಗಳ ಸ್ಥಿರತೆಯು ಒಂದು ನವೀನ ಆಣ್ವಿಕ ಕಾರ್ಯವಿಧಾನವನ್ನು ಒದಗಿಸುತ್ತದೆ, ಇದರ ಮೂಲಕ ಜೀನ್ ಅಭಿವ್ಯಕ್ತಿಯಲ್ಲಿ ಔಷಧ-ಪ್ರೇರಿತ ಬದಲಾವಣೆಗಳು ತುಲನಾತ್ಮಕವಾಗಿ ದೀರ್ಘಾವಧಿಯ ಔಷಧ ಹಿಂಪಡೆಯುವಿಕೆಯ ಹೊರತಾಗಿಯೂ ಉಳಿಯಬಹುದು.
ದುರುಪಯೋಗದ drugs ಷಧಿಗಳ ಲಾಭದಾಯಕ ಪರಿಣಾಮಗಳಲ್ಲಿ ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ನಿರ್ಣಾಯಕ ಪಾತ್ರ ವಹಿಸುತ್ತದೆಯಾದರೂ, ಆಹಾರ, ಪಾನೀಯ, ಲೈಂಗಿಕತೆ ಮತ್ತು ಸಾಮಾಜಿಕ ಸಂವಹನಗಳಂತಹ (12, 13) ನೈಸರ್ಗಿಕ ಬಲವರ್ಧಕಗಳಿಗೆ ಪ್ರತಿಕ್ರಿಯೆಗಳನ್ನು ನಿಯಂತ್ರಿಸುವ ಮೂಲಕ ಇದು ಸಾಮಾನ್ಯವಾಗಿ ಕಾರ್ಯನಿರ್ವಹಿಸುತ್ತದೆ ಎಂದು ನಂಬಲಾಗಿದೆ. ಇದರ ಪರಿಣಾಮವಾಗಿ, ಇತರ ಕಂಪಲ್ಸಿವ್ ನಡವಳಿಕೆಗಳಲ್ಲಿ (ಉದಾ., ರೋಗಶಾಸ್ತ್ರೀಯ ಅತಿಯಾಗಿ ತಿನ್ನುವುದು, ಜೂಜು, ವ್ಯಾಯಾಮ, ಇತ್ಯಾದಿ) ಈ ಮೆದುಳಿನ ಪ್ರದೇಶದ ಸಂಭವನೀಯ ಪಾತ್ರದ ಬಗ್ಗೆ ಸಾಕಷ್ಟು ಆಸಕ್ತಿ ಇದೆ. ಈ ಕಾರಣಕ್ಕಾಗಿ, ಕಂಪೋಸ್ಸಿವ್ ಚಾಲನೆಯಲ್ಲಿರುವ ಪ್ರಾಣಿಗಳ ಮಾದರಿಯಲ್ಲಿ osFosB ಅನ್ನು ನಿಯಂತ್ರಿಸಲಾಗಿದೆಯೇ ಎಂದು ನಾವು ಪರಿಶೀಲಿಸಿದ್ದೇವೆ. ವಾಸ್ತವವಾಗಿ, osFosB ಯ ಸ್ಥಿರವಾದ 35- ರಿಂದ 37-kDa ಐಸೋಫಾರ್ಮ್ಗಳು ಕಡ್ಡಾಯ ಚಾಲನೆಯಲ್ಲಿರುವ ನಡವಳಿಕೆಯನ್ನು ತೋರಿಸುವ ಇಲಿಗಳಲ್ಲಿನ ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಗಳೊಳಗೆ ಆಯ್ದವಾಗಿ ಪ್ರಚೋದಿಸಲ್ಪಡುತ್ತವೆ.
ಸ್ಥಿರ osFosB ಐಸೋಫಾರ್ಮ್ಗಳ ಜೀವರಾಸಾಯನಿಕ ಗುರುತು
ಮೇಲೆ ಹೇಳಿದಂತೆ, ದುರುಪಯೋಗ ಅಥವಾ ಕಂಪಲ್ಸಿವ್ ಚಾಲನೆಯಲ್ಲಿರುವ ದೀರ್ಘಕಾಲದ ಆಡಳಿತದ ನಂತರ ಸಂಗ್ರಹವಾಗುವ osFosB ಐಸೋಫಾರ್ಮ್ಗಳು 35-37 kDa ನ ಆಣ್ವಿಕ ದ್ರವ್ಯರಾಶಿಯನ್ನು ತೋರಿಸುತ್ತವೆ. ΔFosB ಯ 33-kDa ಐಸೋಫಾರ್ಮ್ನಿಂದ ಅವುಗಳನ್ನು ಪ್ರತ್ಯೇಕಿಸಬಹುದು, ಇದು ಒಂದೇ drug ಷಧಿ ಮಾನ್ಯತೆ (Fig. 1) (14, 19, 22) ನಂತರ ವೇಗವಾಗಿ ಆದರೆ ಅಸ್ಥಿರವಾಗಿ ಪ್ರಚೋದಿಸಲ್ಪಡುತ್ತದೆ. ಪ್ರಸ್ತುತ ಪುರಾವೆಗಳು 33-kDa ಐಸೋಫಾರ್ಮ್ ಪ್ರೋಟೀನ್ನ ಸ್ಥಳೀಯ ರೂಪವಾಗಿದೆ, ಇದು ಹೆಚ್ಚು ಸ್ಥಿರವಾದ 35- ರಿಂದ 37-kDa ಉತ್ಪನ್ನಗಳನ್ನು (19, 21) ರೂಪಿಸಲು ಬದಲಾಗುತ್ತದೆ. ಆದಾಗ್ಯೂ, ಅಸ್ಥಿರವಾದ 33-kDa ಐಸೋಫಾರ್ಮ್ ಅನ್ನು ಸ್ಥಿರ 35- ಗೆ 37-kDa ಐಸೋಫಾರ್ಮ್ಗಳಾಗಿ ಪರಿವರ್ತಿಸುವ ಜೀವರಾಸಾಯನಿಕ ಮಾರ್ಪಾಡಿನ ಸ್ವರೂಪವು ಅಸ್ಪಷ್ಟವಾಗಿಯೇ ಉಳಿದಿದೆ. ಫಾಸ್ಫೊರಿಲೇಷನ್ ಕಾರಣವಾಗಬಹುದು ಎಂದು X ಹಿಸಲಾಗಿದೆ (11). ಉದಾಹರಣೆಗೆ, ಸ್ಟ್ರೈಟಲ್-ಪುಷ್ಟೀಕರಿಸಿದ ಪ್ರೋಟೀನ್ (32, 23) DARPP-24 ಕೊರತೆಯ ಇಲಿಗಳಲ್ಲಿ osFosB ಯ ಪ್ರಚೋದನೆಯು ಕಂಡುಬರುತ್ತದೆ. DARPP-32 ಪ್ರೋಟೀನ್ ಫಾಸ್ಫಟೇಸ್- 1 ಮತ್ತು ಪ್ರೋಟೀನ್ ಕೈನೇಸ್ A (25, 26) ಗಳ ವೇಗವರ್ಧಕ ಚಟುವಟಿಕೆಯನ್ನು ನಿಯಂತ್ರಿಸುತ್ತದೆ, ಸ್ಥಿರ osFosB ಐಸೋಫಾರ್ಮ್ಗಳ ಸಾಮಾನ್ಯ ಶೇಖರಣೆಗೆ ಈ ಪ್ರೋಟೀನ್ನ ಅವಶ್ಯಕತೆಯು ಈ ಸ್ಥಿರ ಉತ್ಪನ್ನಗಳ ಉತ್ಪಾದನೆಯಲ್ಲಿ ಫಾಸ್ಫೊರಿಲೇಷನ್ಗೆ ಸಂಭವನೀಯ ಪಾತ್ರವನ್ನು ಸೂಚಿಸುತ್ತದೆ.
ಮಾದಕ ದ್ರವ್ಯಗಳ ವರ್ತನೆಗೆ ಪ್ಲಾಸ್ಟಿಕ್ನಲ್ಲಿ osFosB ಯ ಪಾತ್ರ
ಮಾದಕ ವ್ಯಸನದಲ್ಲಿ ΔFosB ಪಾತ್ರದ ಒಳನೋಟವು ಹೆಚ್ಚಾಗಿ ಟ್ರಾನ್ಸ್ಜೆನಿಕ್ ಇಲಿಗಳ ಅಧ್ಯಯನದಿಂದ ಬಂದಿದೆ, ಇದರಲ್ಲಿ ΔFosB ಅನ್ನು ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ಮತ್ತು ವಯಸ್ಕ ಪ್ರಾಣಿಗಳ ಇತರ ಸ್ಟ್ರೈಟಲ್ ಪ್ರದೇಶಗಳಲ್ಲಿ ಆಯ್ದವಾಗಿ ಪ್ರಚೋದಿಸಬಹುದು (27, 28). ಮುಖ್ಯವಾಗಿ, ಈ ಇಲಿಗಳು ಡೈನಾರ್ಫಿನ್/ಪದಾರ್ಥ P-ಒಳಗೊಂಡಿರುವ ಮಧ್ಯಮ ಸ್ಪೈನಿ ನ್ಯೂರಾನ್ಗಳಲ್ಲಿ ಆಯ್ದವಾಗಿ ΔFosB ಅನ್ನು ಅತಿಯಾಗಿ ವ್ಯಕ್ತಪಡಿಸುತ್ತವೆ, ಅಲ್ಲಿ ಔಷಧಗಳು ಪ್ರೋಟೀನ್ ಅನ್ನು ಪ್ರೇರೇಪಿಸುತ್ತವೆ ಎಂದು ನಂಬಲಾಗಿದೆ. ದೀರ್ಘಕಾಲದ ಔಷಧ ಒಡ್ಡಿಕೆಯ ನಂತರ ಅನೇಕ ವಿಧಗಳಲ್ಲಿ ಪ್ರಾಣಿಗಳನ್ನು ಹೋಲುವ ΔFosB-ಅತಿಯಾಗಿ ವ್ಯಕ್ತಪಡಿಸುವ ಇಲಿಗಳ ವರ್ತನೆಯ ಫಿನೋಟೈಪ್ ಅನ್ನು ಕೋಷ್ಟಕ 1 ರಲ್ಲಿ ಸಂಕ್ಷೇಪಿಸಲಾಗಿದೆ. ತೀವ್ರ ಮತ್ತು ದೀರ್ಘಕಾಲೀನ ಆಡಳಿತದ ನಂತರ ಇಲಿಗಳು ಕೊಕೇನ್ಗೆ ವರ್ಧಿತ ಲೊಕೊಮೊಟರ್ ಪ್ರತಿಕ್ರಿಯೆಗಳನ್ನು ತೋರಿಸುತ್ತವೆ (28). ಪ್ಲೇಸ್-ಕಂಡೀಷನಿಂಗ್ ಅಸ್ಸೇಗಳಲ್ಲಿ (11, 28) ಕೊಕೇನ್ ಮತ್ತು ಮಾರ್ಫಿನ್ನ ಪ್ರತಿಫಲಿತ ಪರಿಣಾಮಗಳಿಗೆ ಅವು ವರ್ಧಿತ ಸಂವೇದನೆಯನ್ನು ತೋರಿಸುತ್ತವೆ ಮತ್ತು ΔFosB ಅನ್ನು ಅತಿಯಾಗಿ ವ್ಯಕ್ತಪಡಿಸದ ಲಿಟರ್ಮೇಟ್ಗಳಿಗಿಂತ ಕಡಿಮೆ ಪ್ರಮಾಣದ ಕೊಕೇನ್ ಅನ್ನು ಸ್ವಯಂ-ನಿರ್ವಹಿಸುತ್ತವೆ. ‡ ಇದಕ್ಕೆ ವಿರುದ್ಧವಾಗಿ, ಈ ಪ್ರಾಣಿಗಳು ಕೊಕೇನ್ಗೆ ಸಾಮಾನ್ಯ ನಿಯಮಾಧೀನ ಲೊಕೊಮೊಟರ್ ಸಂವೇದನೆಯನ್ನು ಮತ್ತು ಮೋರಿಸ್ ನೀರಿನ ಜಟಿಲದಲ್ಲಿ ಸಾಮಾನ್ಯ ಪ್ರಾದೇಶಿಕ ಕಲಿಕೆಯನ್ನು ತೋರಿಸುತ್ತವೆ (28). ಈ ದತ್ತಾಂಶವು ΔFosB ಕೊಕೇನ್ ಮತ್ತು ಬಹುಶಃ ಇತರ ದುರುಪಯೋಗದ ಔಷಧಿಗಳಿಗೆ ಪ್ರಾಣಿಗಳ ಸೂಕ್ಷ್ಮತೆಯನ್ನು ಹೆಚ್ಚಿಸುತ್ತದೆ ಮತ್ತು ಔಷಧಿಗಳಿಗೆ ತುಲನಾತ್ಮಕವಾಗಿ ದೀರ್ಘಕಾಲದ ಸಂವೇದನೆಗಾಗಿ ಒಂದು ಕಾರ್ಯವಿಧಾನವನ್ನು ಪ್ರತಿನಿಧಿಸಬಹುದು ಎಂದು ಸೂಚಿಸುತ್ತದೆ.
 ಸ್ಟ್ರೈಟಮ್
| ತೀವ್ರವಾದ ಮತ್ತು ಪುನರಾವರ್ತಿತ ಕೊಕೇನ್ ಆಡಳಿತಕ್ಕೆ ಪ್ರತಿಕ್ರಿಯೆಯಾಗಿ ಲೊಕೊಮೊಟರ್ ಸಕ್ರಿಯಗೊಳಿಸುವಿಕೆ ಹೆಚ್ಚಾಗಿದೆ. |
| ಪ್ಲೇಸ್-ಕಂಡೀಷನಿಂಗ್ ಅಸ್ಸೇಗಳಲ್ಲಿ ಕೊಕೇನ್ ಮತ್ತು ಮಾರ್ಫೈನ್ಗೆ ಹೆಚ್ಚಿನ ಲಾಭದಾಯಕ ಪ್ರತಿಕ್ರಿಯೆಗಳು. |
| ಕಡಿಮೆ ಪ್ರಮಾಣದ ಕೊಕೇನ್ ಸ್ವಯಂ ಆಡಳಿತವನ್ನು ಹೆಚ್ಚಿಸಿದೆ. |
| ಪ್ರಗತಿಶೀಲ ಅನುಪಾತದ ಮೌಲ್ಯಮಾಪನಗಳಲ್ಲಿ ಕೊಕೇನ್ಗೆ ಹೆಚ್ಚಿದ ಪ್ರೇರಣೆ. |
| ಆಲ್ಕೊಹಾಲ್ಗೆ ಹೆಚ್ಚಿದ ಆಂಜಿಯೋಲೈಟಿಕ್ ಪ್ರತಿಕ್ರಿಯೆಗಳು. |
| ಕಂಪಲ್ಸಿವ್ ಚಾಲನೆಯಲ್ಲಿರುವ ವರ್ತನೆ ಹೆಚ್ಚಾಗಿದೆ. |
ಉಲ್ಲೇಖಗಳು 28 ಮತ್ತು 29 ರಲ್ಲಿರುವ ದತ್ತಾಂಶವನ್ನು ಆಧರಿಸಿ. † ‡§¶
ಬಿಹೇವಿಯರಲ್ ಪ್ಲಾಸ್ಟಿಟಿಯು ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್-ಡಾರ್ಸಲ್ ಸ್ಟ್ರೈಟಂನಲ್ಲಿ ΔFosB ಯಿಂದ ಮಧ್ಯಸ್ಥಿಕೆ ವಹಿಸುತ್ತದೆ
ಇದಲ್ಲದೆ , ΔFosB ನ ಪರಿಣಾಮಗಳು ವ್ಯಸನ ಪ್ರಕ್ರಿಯೆಗೆ ಸಂಬಂಧಿಸಿದ ಹೆಚ್ಚು ಸಂಕೀರ್ಣ ನಡವಳಿಕೆಗಳಿಗೆ ಔಷಧ ಸಂವೇದನೆಯ ನಿಯಂತ್ರಣವನ್ನು ಮೀರಿ ವಿಸ್ತರಿಸಬಹುದು ಎಂಬುದಕ್ಕೆ ಪ್ರಾಥಮಿಕ ಪುರಾವೆಗಳಿವೆ. ΔFosB ಅನ್ನು ವ್ಯಕ್ತಪಡಿಸುವ ಇಲಿಗಳು ಪ್ರಗತಿಶೀಲ ಅನುಪಾತದ ಸ್ವ-ಆಡಳಿತ ಪರೀಕ್ಷೆಗಳಲ್ಲಿ ಕೊಕೇನ್ ಅನ್ನು ಸ್ವಯಂ-ನಿರ್ವಹಿಸಲು ಹೆಚ್ಚು ಶ್ರಮಿಸುತ್ತವೆ, ΔFosB ಪ್ರಾಣಿಗಳನ್ನು ಕೊಕೇನ್ನ ಪ್ರೋತ್ಸಾಹಕ ಪ್ರೇರಕ ಗುಣಲಕ್ಷಣಗಳಿಗೆ ಸಂವೇದನಾಶೀಲಗೊಳಿಸಬಹುದು ಮತ್ತು ಆ ಮೂಲಕ ಔಷಧ ಹಿಂತೆಗೆದುಕೊಳ್ಳುವಿಕೆಯ ನಂತರ ಮರುಕಳಿಸುವಿಕೆಯ ಪ್ರವೃತ್ತಿಗೆ ಕಾರಣವಾಗಬಹುದು ಎಂದು ಸೂಚಿಸುತ್ತದೆ . ΔFosB-ವ್ಯಕ್ತಪಡಿಸುವ ಇಲಿಗಳು ಆಲ್ಕೋಹಾಲ್ನ ವರ್ಧಿತ ಆಂಜಿಯೋಲೈಟಿಕ್ ಪರಿಣಾಮಗಳನ್ನು ಸಹ ತೋರಿಸುತ್ತವೆ, § ಮಾನವರಲ್ಲಿ ಹೆಚ್ಚಿದ ಆಲ್ಕೋಹಾಲ್ ಸೇವನೆಯೊಂದಿಗೆ ಸಂಬಂಧ ಹೊಂದಿರುವ ಫಿನೋಟೈಪ್. ಒಟ್ಟಾರೆಯಾಗಿ, ಈ ಆರಂಭಿಕ ಸಂಶೋಧನೆಗಳು ΔFosB, ದುರುಪಯೋಗದ ಔಷಧಿಗಳಿಗೆ ಹೆಚ್ಚಿದ ಸಂವೇದನೆಯ ಜೊತೆಗೆ, ಮಾದಕವಸ್ತು-ಅಪೇಕ್ಷೆಯ ನಡವಳಿಕೆಯನ್ನು ಉತ್ತೇಜಿಸುವ ನಡವಳಿಕೆಯಲ್ಲಿ ಗುಣಾತ್ಮಕ ಬದಲಾವಣೆಗಳನ್ನು ಉತ್ಪಾದಿಸುತ್ತದೆ ಎಂದು ಸೂಚಿಸುತ್ತವೆ. ಹೀಗಾಗಿ, ΔFosB ನಿರಂತರ "ಆಣ್ವಿಕ ಸ್ವಿಚ್" ಆಗಿ ಕಾರ್ಯನಿರ್ವಹಿಸಬಹುದು, ಅದು ವ್ಯಸನಕಾರಿ ಸ್ಥಿತಿಯ ನಿರ್ಣಾಯಕ ಅಂಶಗಳನ್ನು ಪ್ರಾರಂಭಿಸಲು ಮತ್ತು ನಿರ್ವಹಿಸಲು ಸಹಾಯ ಮಾಡುತ್ತದೆ. ಪ್ರಸ್ತುತ ತನಿಖೆಯಲ್ಲಿರುವ ಒಂದು ಪ್ರಮುಖ ಪ್ರಶ್ನೆಯೆಂದರೆ, ಔಷಧದ ಮಾನ್ಯತೆ ಸಮಯದಲ್ಲಿ ΔFosB ಸಂಗ್ರಹವು ವಿಸ್ತೃತ ವಾಪಸಾತಿ ಅವಧಿಗಳ ನಂತರ, ΔFosB ಮಟ್ಟಗಳು ಸಾಮಾನ್ಯೀಕರಿಸಿದ ನಂತರವೂ ಔಷಧ-ಅಪೇಕ್ಷೆಯ ನಡವಳಿಕೆಯನ್ನು ಉತ್ತೇಜಿಸುತ್ತದೆಯೇ ಎಂಬುದು (ಕೆಳಗೆ ನೋಡಿ).
ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ಮತ್ತು ಡಾರ್ಸಲ್ ಸ್ಟ್ರೈಟಮ್ ಒಳಗೆ ಆಯ್ದವಾಗಿ ΔFosB ಅನ್ನು ಅತಿಯಾಗಿ ವ್ಯಕ್ತಪಡಿಸುವ ವಯಸ್ಕ ಇಲಿಗಳು ನಿಯಂತ್ರಣ ಲಿಟರ್ಮೇಟ್ಗಳೊಂದಿಗೆ ಹೋಲಿಸಿದರೆ ಹೆಚ್ಚಿನ ಕಂಪಲ್ಸಿವ್ ಓಟವನ್ನು ಪ್ರದರ್ಶಿಸುತ್ತವೆ. † ಈ ಅವಲೋಕನಗಳು ಈ ನ್ಯೂರಾನ್ಗಳೊಳಗಿನ ΔFosB ಶೇಖರಣೆಯು ಅಭ್ಯಾಸದ ನೆನಪುಗಳು ಮತ್ತು ಕಂಪಲ್ಸಿವ್ ನಡವಳಿಕೆಗಳ ರಚನೆ ಮತ್ತು ನಿರ್ವಹಣೆಯಲ್ಲಿ ಹೆಚ್ಚು ಸಾಮಾನ್ಯ ಪಾತ್ರವನ್ನು ವಹಿಸುತ್ತದೆ ಎಂಬ ಆಸಕ್ತಿದಾಯಕ ಸಾಧ್ಯತೆಯನ್ನು ಹೆಚ್ಚಿಸುತ್ತದೆ, ಬಹುಶಃ ಆ ನರಕೋಶಗಳು ಕಾರ್ಯನಿರ್ವಹಿಸುವ ನರ ಸರ್ಕ್ಯೂಟ್ಗಳ ಪರಿಣಾಮಕಾರಿತ್ವವನ್ನು ಬಲಪಡಿಸುವ ಮೂಲಕ.
ಕೊಕೇನ್ಗೆ ದೀರ್ಘಕಾಲೀನ ಒಡ್ಡಿಕೊಂಡ ನಂತರ ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ಮತ್ತು ಡಾರ್ಸಲ್ ಸ್ಟ್ರೈಟಮ್ನ ಹೊರಗಿನ ಕೆಲವು ಮೆದುಳಿನ ಪ್ರದೇಶಗಳಲ್ಲಿ ΔFosB ಸಂಗ್ರಹಗೊಳ್ಳುತ್ತದೆ. ಈ ಪ್ರದೇಶಗಳಲ್ಲಿ ಪ್ರಮುಖವಾದವು ಅಮಿಗ್ಡಾಲಾ ಮತ್ತು ಮಧ್ಯದ ಪ್ರಿಫ್ರಂಟಲ್ ಕಾರ್ಟೆಕ್ಸ್ (15). ವ್ಯಸನ ಫಿನೋಟೈಪ್ಗೆ ಈ ಪ್ರದೇಶಗಳಲ್ಲಿ ΔFosB ಪ್ರಚೋದನೆಯ ಕೊಡುಗೆಗಳನ್ನು ಅರ್ಥಮಾಡಿಕೊಳ್ಳುವುದು ಪ್ರಸ್ತುತ ಸಂಶೋಧನೆಯ ಪ್ರಮುಖ ಗುರಿಯಾಗಿದೆ.
ಈ ಪ್ರಾಣಿಗಳು ಕೊಕೇನ್ನ ಲೊಕೊಮೊಟರ್ ಪರಿಣಾಮಗಳಿಗೆ ಸಂವೇದನೆಯನ್ನು ಅಭಿವೃದ್ಧಿಪಡಿಸುವಲ್ಲಿ ವಿಫಲವಾಗಿವೆ ಎಂದು ಫಾಸ್ಬಿ ನಾಕ್ out ಟ್ ಇಲಿಗಳ ಹಿಂದಿನ ಕೆಲಸವು ಬಹಿರಂಗಪಡಿಸಿತು, ಇದು ಮೇಲೆ ತಿಳಿಸಲಾದ osFosB-overexpressing ಇಲಿಗಳ ಸಂಶೋಧನೆಗಳಿಗೆ ಅನುಗುಣವಾಗಿರುತ್ತದೆ (22). ಆದಾಗ್ಯೂ, ಫಾಸ್ಬಿ ರೂಪಾಂತರಿತ ರೂಪಗಳು ಕೊಕೇನ್ನ ತೀವ್ರ ಪರಿಣಾಮಗಳಿಗೆ ವರ್ಧಿತ ಸಂವೇದನೆಯನ್ನು ತೋರಿಸಿದವು, ಇದು ಈ ಇತರ ಸಂಶೋಧನೆಗಳಿಗೆ ಹೊಂದಿಕೆಯಾಗುವುದಿಲ್ಲ. ಫೋಸ್ಬಿ ರೂಪಾಂತರಿತ ರೂಪಗಳೊಂದಿಗಿನ ಸಂಶೋಧನೆಗಳ ವ್ಯಾಖ್ಯಾನವು ಈ ಪ್ರಾಣಿಗಳಿಗೆ osFosB ಮಾತ್ರವಲ್ಲ, ಪೂರ್ಣ-ಉದ್ದದ FosB ಯನ್ನೂ ಹೊಂದಿರುವುದಿಲ್ಲ ಎಂಬ ಅಂಶದಿಂದ ಜಟಿಲವಾಗಿದೆ. ಇದಲ್ಲದೆ, ಮ್ಯಟೆಂಟ್ಸ್ ಮೆದುಳಿನಾದ್ಯಂತ ಮತ್ತು ಅಭಿವೃದ್ಧಿಯ ಆರಂಭಿಕ ಹಂತಗಳಿಂದ ಎರಡೂ ಪ್ರೋಟೀನ್ಗಳನ್ನು ಹೊಂದಿರುವುದಿಲ್ಲ. ವಾಸ್ತವವಾಗಿ, ಇತ್ತೀಚಿನ ಕೃತಿಗಳು osFosB ಅತಿಯಾದ ಎಕ್ಸ್ಪ್ರೆಸಿಂಗ್ ಇಲಿಗಳ ತೀರ್ಮಾನಗಳನ್ನು ಬೆಂಬಲಿಸುತ್ತದೆ: ಸಿ-ಜುನ್ನ ಮೊಟಕುಗೊಂಡ ರೂಪಾಂತರಿತ ಪ್ರಚೋದಕ ಅತಿಯಾದ ಒತ್ತಡ, ಇದು osFosB ಯ ಪ್ರಬಲ ನಕಾರಾತ್ಮಕ ವಿರೋಧಿಯಾಗಿ ಕಾರ್ಯನಿರ್ವಹಿಸುತ್ತದೆ, ಇದು ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಗಳಲ್ಲಿ ಮತ್ತು ಡಾರ್ಸಲ್ ಸ್ಟ್ರೈಟಂನಲ್ಲಿ ಆಯ್ದವಾಗಿ ಕೊಕೇನ್ನ ಲಾಭದಾಯಕ ಪರಿಣಾಮಗಳಿಗೆ ಕಡಿಮೆ ಸಂವೇದನೆಯನ್ನು ತೋರಿಸುತ್ತದೆ .¶ ಈ ಆವಿಷ್ಕಾರಗಳು ಇಲಿಗಳ ಫಲಿತಾಂಶಗಳನ್ನು ರಚನಾತ್ಮಕ ರೂಪಾಂತರಗಳೊಂದಿಗೆ ವ್ಯಾಖ್ಯಾನಿಸುವಲ್ಲಿ ಬಳಸಬೇಕಾದ ಎಚ್ಚರಿಕೆಯನ್ನು ಒತ್ತಿಹೇಳುತ್ತವೆ ಮತ್ತು ವಯಸ್ಕರ ಮೆದುಳಿನಲ್ಲಿ ಪ್ಲಾಸ್ಟಿಟಿಯ ಅಧ್ಯಯನದಲ್ಲಿ ಪ್ರಚೋದಿಸಲಾಗದ ಮತ್ತು ಕೋಶ ಪ್ರಕಾರ-ನಿರ್ದಿಷ್ಟ ರೂಪಾಂತರಗಳೊಂದಿಗೆ ಇಲಿಗಳ ಮಹತ್ವವನ್ನು ವಿವರಿಸುತ್ತದೆ.
OsFosB ಗಾಗಿ ಟಾರ್ಗೆಟ್ ಜೀನ್ಗಳು
ΔFosB ಒಂದು ಪ್ರತಿಲೇಖನ ಅಂಶವಾಗಿರುವುದರಿಂದ, ಬಹುಶಃ ಪ್ರೋಟೀನ್ ಇತರ ಜೀನ್ಗಳ ಅಭಿವ್ಯಕ್ತಿಯಲ್ಲಿನ ಬದಲಾವಣೆಗಳ ಮೂಲಕ ವರ್ತನೆಯ ಪ್ಲಾಸ್ಟಿಟಿಯನ್ನು ಉಂಟುಮಾಡುತ್ತದೆ. ΔFosB ಅನ್ನು fosB ಜೀನ್ನ ಪರ್ಯಾಯ ಸ್ಪ್ಲೈಸಿಂಗ್ನಿಂದ ಉತ್ಪಾದಿಸಲಾಗುತ್ತದೆ ಮತ್ತು ಪೂರ್ಣ-ಉದ್ದದ FosB ನಲ್ಲಿರುವ C-ಟರ್ಮಿನಲ್ ಟ್ರಾನ್ಸ್ಆಕ್ಟಿವೇಷನ್ ಡೊಮೇನ್ನ ಒಂದು ಭಾಗವನ್ನು ಹೊಂದಿರುವುದಿಲ್ಲ. ಪರಿಣಾಮವಾಗಿ, ΔFosB ಒಂದು ಪ್ರತಿಲೇಖನ ದಮನಕಾರಿಯಾಗಿ ಕಾರ್ಯನಿರ್ವಹಿಸುತ್ತದೆ ಎಂದು ಮೂಲತಃ ಪ್ರಸ್ತಾಪಿಸಲಾಯಿತು (29). ಆದಾಗ್ಯೂ, ಕೋಶ ಸಂಸ್ಕೃತಿಯಲ್ಲಿನ ಕೆಲಸವು ΔFosB ಬಳಸಿದ ನಿರ್ದಿಷ್ಟ AP-1 ಸೈಟ್ ಅನ್ನು ಅವಲಂಬಿಸಿ AP-1-ಮಧ್ಯಸ್ಥಿಕೆಯ ಪ್ರತಿಲೇಖನವನ್ನು ಪ್ರೇರೇಪಿಸಬಹುದು ಅಥವಾ ನಿಗ್ರಹಿಸಬಹುದು ಎಂದು ಸ್ಪಷ್ಟವಾಗಿ ತೋರಿಸಿದೆ (21, 29–31). ಪೂರ್ಣ-ಉದ್ದದ FosB ಕೆಲವು ಪ್ರವರ್ತಕ ತುಣುಕುಗಳ ಮೇಲೆ ΔFosB ಯಂತೆಯೇ ಪರಿಣಾಮಗಳನ್ನು ಬೀರುತ್ತದೆ, ಆದರೆ ಇತರರ ಮೇಲೆ ವಿಭಿನ್ನ ಪರಿಣಾಮಗಳನ್ನು ಬೀರುತ್ತದೆ. ΔFosB ಮತ್ತು FosB ಯ ಈ ವೈವಿಧ್ಯಮಯ ಕ್ರಿಯೆಗಳ ಆಧಾರವಾಗಿರುವ ಕಾರ್ಯವಿಧಾನಗಳನ್ನು ಅರ್ಥಮಾಡಿಕೊಳ್ಳಲು ಹೆಚ್ಚಿನ ಕೆಲಸ ಅಗತ್ಯವಿದೆ.
GroupFosB ಗಾಗಿ ಗುರಿ ಜೀನ್ಗಳನ್ನು ಗುರುತಿಸಲು ನಮ್ಮ ಗುಂಪು ಎರಡು ವಿಧಾನಗಳನ್ನು ಬಳಸಿದೆ. ಒಂದು ಅಭ್ಯರ್ಥಿ ಜೀನ್ ವಿಧಾನ. ನಾವು ಮೊದಲಿಗೆ α- ಅಮೈನೊ -3-ಹೈಡ್ರಾಕ್ಸಿ -5-ಮೀಥೈಲ್ -4-ಐಸೊಕ್ಸಜೋಲೆಪ್ರೊಪಿಯೋನಿಕ್ ಆಸಿಡ್ (ಎಎಂಪಿಎ) ಗ್ಲುಟಮೇಟ್ ಗ್ರಾಹಕಗಳನ್ನು ಪುಟ್ಟೇಟಿವ್ ಗುರಿಗಳಾಗಿ ಪರಿಗಣಿಸಿದ್ದೇವೆ, ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಗಳಲ್ಲಿ ಗ್ಲುಟಾಮಾಟರ್ಜಿಕ್ ಪ್ರಸರಣದ ಪ್ರಮುಖ ಪಾತ್ರವನ್ನು ನೀಡಲಾಗಿದೆ. ಇಲ್ಲಿಯವರೆಗಿನ ಕೆಲಸವು ಒಂದು ನಿರ್ದಿಷ್ಟ ಎಎಂಪಿಎ ಗ್ಲುಟಮೇಟ್ ರಿಸೆಪ್ಟರ್ ಸಬ್ಯುನಿಟ್, ಗ್ಲುಆರ್ 2, os ಫಾಸ್ಬಿ (ಚಿತ್ರ 2) ಗೆ ಉತ್ತಮ ಗುರಿಯಾಗಿರಬಹುದು ಎಂದು ಸೂಚಿಸಿದೆ. ಗ್ಲುಆರ್ 2 ಅಭಿವ್ಯಕ್ತಿ, ಆದರೆ ಇತರ ಎಎಂಪಿಎ ರಿಸೆಪ್ಟರ್ ಉಪಘಟಕಗಳ ಅಭಿವ್ಯಕ್ತಿ ಅಲ್ಲ, Δ ಫಾಸ್ಬಿ (28) ನ ಅತಿಯಾದ ಒತ್ತಡದ ಮೇಲೆ ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಗಳಲ್ಲಿ (ಆದರೆ ಡಾರ್ಸಲ್ ಸ್ಟ್ರೈಟಮ್ ಅಲ್ಲ) ಹೆಚ್ಚಾಗುತ್ತದೆ, ಮತ್ತು ಪ್ರಬಲ negative ಣಾತ್ಮಕ ರೂಪಾಂತರಿತ ಅಭಿವ್ಯಕ್ತಿಯು ಪ್ರೋಟೀನ್ನ್ನು ಪ್ರಚೋದಿಸುವ ಕೊಕೇನ್ನ ಸಾಮರ್ಥ್ಯವನ್ನು ಹೆಚ್ಚಿಸುತ್ತದೆ. ಇದರ ಜೊತೆಯಲ್ಲಿ, ಗ್ಲುಆರ್ 2 ಜೀನ್ನ ಪ್ರವರ್ತಕವು ಒಮ್ಮತದ ಎಪಿ -1 ಸೈಟ್ ಅನ್ನು ಹೊಂದಿದ್ದು ಅದು osFosB (28) ಅನ್ನು ಬಂಧಿಸುತ್ತದೆ. ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಗಳಲ್ಲಿನ ಗ್ಲುಆರ್ 2 ನ ಅತಿಯಾದ ಒತ್ತಡ, ವೈರಲ್-ಮಧ್ಯಸ್ಥ ಜೀನ್ ವರ್ಗಾವಣೆಯ ಮೂಲಕ, ಕೊಕೇನ್ನ ಲಾಭದಾಯಕ ಪರಿಣಾಮಗಳಿಗೆ ಪ್ರಾಣಿಗಳ ಸೂಕ್ಷ್ಮತೆಯನ್ನು ಹೆಚ್ಚಿಸುತ್ತದೆ, ಇದರಿಂದಾಗಿ osFosB- ವ್ಯಕ್ತಪಡಿಸುವ ಇಲಿಗಳಲ್ಲಿ (28) ಕಂಡುಬರುವ ಫಿನೋಟೈಪ್ನ ಭಾಗವನ್ನು ಅನುಕರಿಸುತ್ತದೆ. ದೀರ್ಘಕಾಲದ ಕೊಕೇನ್ ಆಡಳಿತದ ನಂತರ (2) ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ನ್ಯೂರಾನ್ಗಳ ಎಎಮ್ಪಿಎ ರಿಸೆಪ್ಟರ್ ಅಗೊನಿಸ್ಟ್ಗಳಿಗೆ ಗ್ಲುಆರ್ 32 ನ ಇಂಡಕ್ಷನ್ ಕಡಿಮೆಯಾಗಬಹುದು, ಏಕೆಂದರೆ ಗ್ಲುಆರ್ 2 ಹೊಂದಿರುವ ಎಎಮ್ಪಿಎ ಗ್ರಾಹಕಗಳು ಒಟ್ಟಾರೆ ನಡವಳಿಕೆಯನ್ನು ಕಡಿಮೆ ಮಾಡುತ್ತದೆ ಮತ್ತು ಸಿಎ 2 + ಪ್ರವೇಶಸಾಧ್ಯತೆಯನ್ನು ಕಡಿಮೆ ಮಾಡುತ್ತದೆ. ಉದ್ರೇಕಕಾರಿ ಒಳಹರಿವುಗಳಿಗೆ ಈ ನ್ಯೂರಾನ್ಗಳ ಕಡಿಮೆ ಪ್ರತಿಕ್ರಿಯಾತ್ಮಕತೆಯು ದುರುಪಯೋಗದ drug ಷಧಿಯ ಪ್ರತಿಕ್ರಿಯೆಗಳನ್ನು ಹೆಚ್ಚಿಸುತ್ತದೆ. ಆದಾಗ್ಯೂ, ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಗಳಲ್ಲಿನ ಡೋಪಮಿನರ್ಜಿಕ್ ಮತ್ತು ಗ್ಲುಟಾಮಾಟರ್ಜಿಕ್ ಸಂಕೇತಗಳು ವ್ಯಸನಕಾರಿ ನಡವಳಿಕೆಯನ್ನು ನಿಯಂತ್ರಿಸುವ ವಿಧಾನಗಳು ತಿಳಿದಿಲ್ಲ; ಇದಕ್ಕೆ ನರ ಸರ್ಕ್ಯೂಟ್ ಮಟ್ಟದ ತಿಳುವಳಿಕೆ ಅಗತ್ಯವಿರುತ್ತದೆ, ಅದು ಇನ್ನೂ ಲಭ್ಯವಿಲ್ಲ.
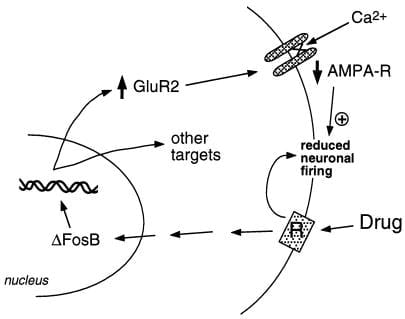
ಚಿತ್ರ 2
AMPA ಗ್ಲುಟಮೇಟ್ ಗ್ರಾಹಕ ಉಪಘಟಕ, GluR2, ΔFosB ಗೆ ಒಂದು ಸಂಭಾವ್ಯ ಗುರಿಯಾಗಿದೆ. GluR2 ನ ΔFosB-ಮಧ್ಯಸ್ಥಿಕೆಯ ಪ್ರಚೋದನೆಯು ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ನ್ಯೂರಾನ್ಗಳ ಶಾರೀರಿಕ ಪ್ರತಿಕ್ರಿಯೆಯನ್ನು ಹೇಗೆ ಬದಲಾಯಿಸಬಹುದು ಮತ್ತು ದುರುಪಯೋಗದ ಔಷಧಿಗಳಿಗೆ ಸೂಕ್ಷ್ಮ ಪ್ರತಿಕ್ರಿಯೆಗಳಿಗೆ ಕಾರಣವಾಗಬಹುದು ಎಂಬುದನ್ನು ತೋರಿಸಲಾಗಿದೆ. ಈ ಯೋಜನೆಯ ಪ್ರಕಾರ, ದುರುಪಯೋಗದ ಔಷಧಗಳು ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ನ್ಯೂರಾನ್ಗಳ ಪ್ರತಿಬಂಧದ ಮೂಲಕ ಅವುಗಳ ತೀವ್ರವಾದ ಬಲವರ್ಧನೆಯ ಪರಿಣಾಮಗಳನ್ನು ಉಂಟುಮಾಡುತ್ತವೆ. ಪುನರಾವರ್ತಿತ ಮಾನ್ಯತೆಯೊಂದಿಗೆ, ಔಷಧಗಳು ΔFosB ಅನ್ನು ಪ್ರೇರೇಪಿಸುತ್ತವೆ, ಇದು GluR2 ಸೇರಿದಂತೆ ಹಲವಾರು ಗುರಿ ಜೀನ್ಗಳನ್ನು ನಿಯಂತ್ರಿಸುತ್ತದೆ. ಇದು GluR2 ಉಪಘಟಕವನ್ನು ಹೊಂದಿರುವ ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ನ್ಯೂರಾನ್ಗಳ ಮೇಲೆ AMPA ಗ್ರಾಹಕಗಳ (AMPA-R) ಅನುಪಾತವನ್ನು ಹೆಚ್ಚಿಸುತ್ತದೆ, ಇದು ಒಟ್ಟಾರೆ AMPA ಪ್ರವಾಹವನ್ನು ಕಡಿಮೆ ಮಾಡುತ್ತದೆ ಮತ್ತು Ca2+ ಪ್ರವಾಹವನ್ನು ಕಡಿಮೆ ಮಾಡುತ್ತದೆ. ಈ ಕಡಿಮೆಯಾದ ಉತ್ಸಾಹವು ನ್ಯೂರಾನ್ಗಳನ್ನು ಔಷಧಿಗಳ ತೀವ್ರ ಪ್ರತಿಬಂಧಕ ಪರಿಣಾಮಗಳಿಗೆ ಮತ್ತು ಆ ಮೂಲಕ ಔಷಧಿಗಳ ಬಲವರ್ಧನೆಯ ಪರಿಣಾಮಗಳಿಗೆ ಹೆಚ್ಚು ಸೂಕ್ಷ್ಮವಾಗಿಸುತ್ತದೆ.
ΔFosB ಗೆ ಮತ್ತೊಂದು ಸಂಭಾವ್ಯ ಗುರಿಯೆಂದರೆ ಡೈನಾರ್ಫಿನ್ ಅನ್ನು ಎನ್ಕೋಡಿಂಗ್ ಮಾಡುವ ಜೀನ್ . ಮೊದಲೇ ಹೇಳಿದಂತೆ, ಡೈನಾರ್ಫಿನ್ ಅನ್ನು ΔFosB ನ ಪ್ರಚೋದನೆಯನ್ನು ತೋರಿಸುವ ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ಮಧ್ಯಮ ಸ್ಪೈನಿ ನ್ಯೂರಾನ್ಗಳ ಉಪವಿಭಾಗದಲ್ಲಿ ವ್ಯಕ್ತಪಡಿಸಲಾಗುತ್ತದೆ . ಡೈನಾರ್ಫಿನ್ ಅಂತರಕೋಶೀಯ ಪ್ರತಿಕ್ರಿಯೆ ಲೂಪ್ನಲ್ಲಿ ಕಾರ್ಯನಿರ್ವಹಿಸುವಂತೆ ಕಾಣುತ್ತದೆ: ಇದರ ಬಿಡುಗಡೆಯು ಮಧ್ಯಮ ಸ್ಪೈನಿ ನ್ಯೂರಾನ್ಗಳನ್ನು ನರಮಂಡಲಗೊಳಿಸುವ ಡೋಪಮಿನರ್ಜಿಕ್ ನ್ಯೂರಾನ್ಗಳನ್ನು ಪ್ರತಿಬಂಧಿಸುತ್ತದೆ, ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಗಳಲ್ಲಿನ ಡೋಪಮಿನರ್ಜಿಕ್ ನರ ಟರ್ಮಿನಲ್ಗಳಲ್ಲಿರುವ κ ಒಪಿಯಾಡ್ ಗ್ರಾಹಕಗಳ ಮೂಲಕ ಮತ್ತು ವೆಂಟ್ರಲ್ ಟೆಗ್ಮೆಂಟಲ್ ಪ್ರದೇಶದಲ್ಲಿನ ಜೀವಕೋಶಗಳು ಮತ್ತು ಡೆಂಡ್ರೈಟ್ಗಳ ಮೇಲೆ (ಚಿತ್ರ 3) (33-35). ಈ ಕಲ್ಪನೆಯು κ ಗ್ರಾಹಕ ಅಗೊನಿಸ್ಟ್ನ ಸಾಮರ್ಥ್ಯದೊಂದಿಗೆ ಸ್ಥಿರವಾಗಿರುತ್ತದೆ, ಈ ಎರಡು ಮೆದುಳಿನ ಪ್ರದೇಶಗಳಲ್ಲಿ ಯಾವುದಾದರೂ ಒಂದಕ್ಕೆ ಆಡಳಿತದ ನಂತರ, ಔಷಧದ ಪ್ರತಿಫಲವನ್ನು ಕಡಿಮೆ ಮಾಡುತ್ತದೆ (35).
ΔFosB ಡೈನಾರ್ಫಿನ್ನ ಅಭಿವ್ಯಕ್ತಿಯನ್ನು ಕಡಿಮೆ ಮಾಡುತ್ತದೆ ಎಂದು ಸಂಶೋಧನಾ ಅಧ್ಯಯನವು ಸೂಚಿಸಿದೆ, ಇದು ΔFosB ಪ್ರಚೋದನೆಯೊಂದಿಗೆ ಕಂಡುಬರುವ ಪ್ರತಿಫಲ ಕಾರ್ಯವಿಧಾನಗಳ ವರ್ಧನೆಗೆ ಕೊಡುಗೆ ನೀಡಬಹುದು. ಕುತೂಹಲಕಾರಿಯಾಗಿ, ಮತ್ತೊಂದು ಔಷಧ-ನಿಯಂತ್ರಿತ ಪ್ರತಿಲೇಖನ ಅಂಶವಾದ CREB (cAMP ಪ್ರತಿಕ್ರಿಯೆ ಅಂಶ ಬಂಧಿಸುವ ಪ್ರೋಟೀನ್) (2, 3), ವಿರುದ್ಧ ಪರಿಣಾಮವನ್ನು ಬೀರುತ್ತದೆ: ಇದು ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಗಳಲ್ಲಿ ಡೈನಾರ್ಫಿನ್ ಅಭಿವ್ಯಕ್ತಿಯನ್ನು ಪ್ರೇರೇಪಿಸುತ್ತದೆ ಮತ್ತು ಕೊಕೇನ್ ಮತ್ತು ಮಾರ್ಫಿನ್ನ ಪ್ರತಿಫಲ ಗುಣಲಕ್ಷಣಗಳನ್ನು ಕಡಿಮೆ ಮಾಡುತ್ತದೆ (4).**
ಔಷಧದ ಆಡಳಿತದ ನಂತರ CREB ಯ ಔಷಧ-ಪ್ರೇರಿತ ಸಕ್ರಿಯಗೊಳಿಸುವಿಕೆಯು ವೇಗವಾಗಿ ಕರಗುವುದರಿಂದ , CREB ಮತ್ತು ΔFosB ಯಿಂದ ಡೈನಾರ್ಫಿನ್ನ ಅಂತಹ ಪರಸ್ಪರ ನಿಯಂತ್ರಣವು ಹಿಂತೆಗೆದುಕೊಳ್ಳುವಿಕೆಯ ಆರಂಭಿಕ ಮತ್ತು ಕೊನೆಯ ಹಂತಗಳಲ್ಲಿ ಸಂಭವಿಸುವ ಪರಸ್ಪರ ವರ್ತನೆಯ ಬದಲಾವಣೆಗಳನ್ನು ವಿವರಿಸಬಹುದು, ನಕಾರಾತ್ಮಕ ಭಾವನಾತ್ಮಕ ಲಕ್ಷಣಗಳು ಮತ್ತು ಹಿಂತೆಗೆದುಕೊಳ್ಳುವಿಕೆಯ ಆರಂಭಿಕ ಹಂತಗಳಲ್ಲಿ ಕಡಿಮೆಯಾದ ಔಷಧ ಸಂವೇದನೆಯು ಪ್ರಾಬಲ್ಯ ಹೊಂದಿದೆ ಮತ್ತು ನಂತರದ ಸಮಯದ ಹಂತಗಳಲ್ಲಿ ಪ್ರಾಬಲ್ಯ ಹೊಂದಿರುವ ಔಷಧಿಗಳ ಪ್ರತಿಫಲ ಮತ್ತು ಪ್ರೋತ್ಸಾಹಕ ಪ್ರೇರಕ ಪರಿಣಾಮಗಳಿಗೆ ಸಂವೇದನೆ.
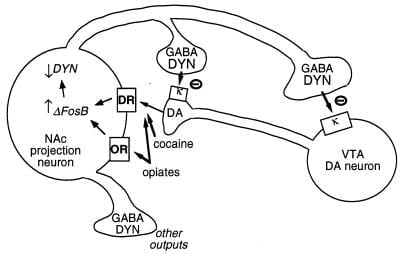
ಚಿತ್ರ 3
ಡೈನಾರ್ಫಿನ್ ΔFosB ಗೆ ಒಂದು ಸಂಭಾವ್ಯ ಗುರಿಯಾಗಿದೆ. ಡೈನಾರ್ಫಿನ್ (DYN) ಅನ್ನು ವ್ಯಕ್ತಪಡಿಸುವ ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ (NAc) GABAergic ಪ್ರೊಜೆಕ್ಷನ್ ನ್ಯೂರಾನ್ನ ವರ್ಗವನ್ನು ಆವಿಷ್ಕರಿಸುವ ವೆಂಟ್ರಲ್ ಟೆಗ್ಮೆಂಟಲ್ ಏರಿಯಾ (VTA) ಡೋಪಮೈನ್ (DA) ನರಕೋಶವನ್ನು ತೋರಿಸಲಾಗಿದೆ. ಡೈನಾರ್ಫಿನ್ ಈ ಸರ್ಕ್ಯೂಟ್ನಲ್ಲಿ ಪ್ರತಿಕ್ರಿಯೆ ಕಾರ್ಯವಿಧಾನವನ್ನು ನಿರ್ವಹಿಸುತ್ತದೆ: NAc ನರಕೋಶಗಳ ಟರ್ಮಿನಲ್ಗಳಿಂದ ಬಿಡುಗಡೆಯಾಗುವ ಡೈನಾರ್ಫಿನ್, ನರ ಟರ್ಮಿನಲ್ಗಳು ಮತ್ತು DA ನರಕೋಶಗಳ ಜೀವಕೋಶಗಳಲ್ಲಿರುವ κ ಒಪಿಯಾಡ್ ಗ್ರಾಹಕಗಳ ಮೇಲೆ ಕಾರ್ಯನಿರ್ವಹಿಸುತ್ತದೆ ಮತ್ತು ಅವುಗಳ ಕಾರ್ಯವನ್ನು ಪ್ರತಿಬಂಧಿಸುತ್ತದೆ. Δ FosB , ಡೈನಾರ್ಫಿನ್ ಅಭಿವ್ಯಕ್ತಿಯನ್ನು ಪ್ರತಿಬಂಧಿಸುವ ಮೂಲಕ, ಈ ಪ್ರತಿಕ್ರಿಯೆ ಲೂಪ್ ಅನ್ನು ಕಡಿಮೆ-ನಿಯಂತ್ರಿಸಬಹುದು ಮತ್ತು ದುರುಪಯೋಗದ ಔಷಧಿಗಳ ಪ್ರತಿಫಲಿತ ಗುಣಲಕ್ಷಣಗಳನ್ನು ಹೆಚ್ಚಿಸಬಹುದು. ಈ ವ್ಯವಸ್ಥೆಯ ಮೇಲೆ CREB ಯ ಪರಸ್ಪರ ಪರಿಣಾಮವನ್ನು ತೋರಿಸಲಾಗಿಲ್ಲ: CREB ಡೈನಾರ್ಫಿನ್ ಅಭಿವ್ಯಕ್ತಿಯನ್ನು ಹೆಚ್ಚಿಸುತ್ತದೆ ಮತ್ತು ಆ ಮೂಲಕ ದುರುಪಯೋಗದ ಔಷಧಿಗಳ ಪ್ರತಿಫಲಿತ ಗುಣಲಕ್ಷಣಗಳನ್ನು ದುರ್ಬಲಗೊಳಿಸುತ್ತದೆ (4). GABA, γ-ಅಮಿನೊಬ್ಯುಟ್ರಿಕ್ ಆಮ್ಲ; DR, ಡೋಪಮೈನ್ ಗ್ರಾಹಕ; OR, ಒಪಿಯಾಡ್ ಗ್ರಾಹಕ.
OsFosB ಗಾಗಿ ಗುರಿ ಜೀನ್ಗಳನ್ನು ಗುರುತಿಸಲು ಬಳಸುವ ಎರಡನೆಯ ವಿಧಾನವು ಡಿಎನ್ಎ ಮೈಕ್ರೊಅರೇ ವಿಶ್ಲೇಷಣೆಯನ್ನು ಒಳಗೊಂಡಿರುತ್ತದೆ. ΔFosB ಯ ಅನಿರ್ದಿಷ್ಟ ಅತಿಯಾದ ಒತ್ತಡವು ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ (36) ನಲ್ಲಿ ಹಲವಾರು ಜೀನ್ಗಳ ಅಭಿವ್ಯಕ್ತಿಯನ್ನು ಹೆಚ್ಚಿಸುತ್ತದೆ ಅಥವಾ ಕಡಿಮೆ ಮಾಡುತ್ತದೆ. ಈ ಪ್ರತಿಯೊಂದು ಜೀನ್ಗಳನ್ನು osFosB ಯ ಶಾರೀರಿಕ ಗುರಿಗಳಾಗಿ ಮೌಲ್ಯೀಕರಿಸಲು ಮತ್ತು ವ್ಯಸನ ಫಿನೋಟೈಪ್ಗೆ ಅವರ ಕೊಡುಗೆಯನ್ನು ಅರ್ಥಮಾಡಿಕೊಳ್ಳಲು ಈಗ ಸಾಕಷ್ಟು ಕೆಲಸಗಳು ಅಗತ್ಯವಿದ್ದರೂ, ಒಂದು ಪ್ರಮುಖ ಗುರಿ ಸಿಡಿಕೆ 5 (ಸೈಕ್ಲಿನ್-ಅವಲಂಬಿತ ಕೈನೇಸ್ -5) ಎಂದು ಕಂಡುಬರುತ್ತದೆ. ಆದ್ದರಿಂದ, ಸಿಡಿಕೆ 5 ಅನ್ನು ಮೊದಲಿಗೆ osFosB- ಮೈಕ್ರೊರೇರ್ಗಳ ಬಳಕೆಯಿಂದ ನಿಯಂತ್ರಿಸಲಾಗುತ್ತದೆ ಎಂದು ಗುರುತಿಸಲಾಯಿತು, ಮತ್ತು ನಂತರ ದೀರ್ಘಕಾಲದ ಕೊಕೇನ್ ಆಡಳಿತದ ನಂತರ (37) ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ಮತ್ತು ಡಾರ್ಸಲ್ ಸ್ಟ್ರೈಟಂನಲ್ಲಿ ಪ್ರಚೋದಿಸಲ್ಪಟ್ಟಿದೆ ಎಂದು ತೋರಿಸಲಾಯಿತು. Os ಫಾಸ್ಬಿ ಸಿಡಿಕೆ 5 ಜೀನ್ ಅನ್ನು ಎಪಿ -1 ಸೈಟ್ ಮೂಲಕ ಜೀನ್ನ ಪ್ರವರ್ತಕ (36) ನಲ್ಲಿ ಸಕ್ರಿಯಗೊಳಿಸುತ್ತದೆ. ಒಟ್ಟಾರೆಯಾಗಿ, ಈ ಡೇಟಾವು ಒಂದು ಯೋಜನೆಯನ್ನು ಬೆಂಬಲಿಸುತ್ತದೆ, ಇದರಲ್ಲಿ ಕೊಕೇನ್ brainFosB ಮೂಲಕ ಈ ಮೆದುಳಿನ ಪ್ರದೇಶಗಳಲ್ಲಿ ಸಿಡಿಕೆ 5 ಅಭಿವ್ಯಕ್ತಿಯನ್ನು ಪ್ರೇರೇಪಿಸುತ್ತದೆ. ಸಿಡಿಕೆ 5 ರ ಇಂಡಕ್ಷನ್ ಡಾರ್ಪಿಪಿ -32 (37) ನ ಹೆಚ್ಚಿದ ಫಾಸ್ಫೊರಿಲೇಷನ್ ಮೂಲಕ ಡೋಪಮಿನರ್ಜಿಕ್ ಸಿಗ್ನಲಿಂಗ್ ಅನ್ನು ಕನಿಷ್ಠ ಭಾಗಶಃ ಬದಲಾಯಿಸುತ್ತದೆ, ಇದನ್ನು ಪ್ರೋಟೀನ್ ಫಾಸ್ಫಟೇಸ್ -1 ರ ಪ್ರತಿರೋಧಕದಿಂದ ಪ್ರೋಟೀನ್ ಕೈನೇಸ್ ಎ ಪ್ರತಿರೋಧಕವಾಗಿ ಪರಿವರ್ತಿಸಲಾಗುತ್ತದೆ ಮತ್ತು ಅದರ ಫಾಸ್ಫೊರಿಲೇಷನ್ ಮೇಲೆ ಸಿಡಿಕೆ 5 (26).
ಡ್ರಗ್ಸ್ ನಿಂದನೆಗೆ “ಶಾಶ್ವತ” ಪ್ಲಾಸ್ಟಿಟಿಯನ್ನು ಮಧ್ಯಸ್ಥಿಕೆ ವಹಿಸುವಲ್ಲಿ osFosB ಯ ಪಾತ್ರ
ΔFosB ಸಿಗ್ನಲ್ ತುಲನಾತ್ಮಕವಾಗಿ ದೀರ್ಘಕಾಲೀನವಾಗಿದ್ದರೂ, ಅದು ಶಾಶ್ವತವಲ್ಲ. ΔFosB ಕ್ರಮೇಣ ಕ್ಷೀಣಿಸುತ್ತದೆ ಮತ್ತು 1-2 ತಿಂಗಳ ಔಷಧಿ ಹಿಂಪಡೆಯುವಿಕೆಯ ನಂತರ ಮೆದುಳಿನಲ್ಲಿ ಇನ್ನು ಮುಂದೆ ಪತ್ತೆಯಾಗುವುದಿಲ್ಲ, ಕೆಲವು ನಡವಳಿಕೆಯ ಅಸಹಜತೆಗಳು ಹೆಚ್ಚು ಸಮಯದವರೆಗೆ ಮುಂದುವರಿದರೂ ಸಹ. ಆದ್ದರಿಂದ, ΔFosB ಈ ಅರೆ-ಶಾಶ್ವತ ವರ್ತನೆಯ ಅಸಹಜತೆಗಳನ್ನು ಮಧ್ಯಸ್ಥಿಕೆ ವಹಿಸಲು ಸಾಧ್ಯವಾಗುವುದಿಲ್ಲ. ವ್ಯಸನಕ್ಕೆ ಸಂಬಂಧಿಸಿದ ಅತ್ಯಂತ ಸ್ಥಿರವಾದ ನಡವಳಿಕೆಯ ಬದಲಾವಣೆಗಳಿಗೆ ಆಧಾರವಾಗಿರುವ ಆಣ್ವಿಕ ರೂಪಾಂತರಗಳನ್ನು ಕಂಡುಹಿಡಿಯುವಲ್ಲಿನ ತೊಂದರೆ ಕಲಿಕೆ ಮತ್ತು ಸ್ಮರಣಶಕ್ತಿ ಕ್ಷೇತ್ರದಲ್ಲಿ ಎದುರಿಸುತ್ತಿರುವ ಸವಾಲುಗಳಿಗೆ ಹೋಲುತ್ತದೆ. ಕಲಿಕೆ ಮತ್ತು ಸ್ಮರಣಶಕ್ತಿಯ ಸೊಗಸಾದ ಸೆಲ್ಯುಲಾರ್ ಮತ್ತು ಆಣ್ವಿಕ ಮಾದರಿಗಳಿದ್ದರೂ, ಹೆಚ್ಚು ಸ್ಥಿರವಾದ ವರ್ತನೆಯ ನೆನಪುಗಳನ್ನು ಲೆಕ್ಕಹಾಕಲು ಸಾಕಷ್ಟು ದೀರ್ಘಕಾಲೀನವಾಗಿರುವ ಆಣ್ವಿಕ ಮತ್ತು ಸೆಲ್ಯುಲಾರ್ ರೂಪಾಂತರಗಳನ್ನು ಗುರುತಿಸಲು ಇಲ್ಲಿಯವರೆಗೆ ಸಾಧ್ಯವಾಗಿಲ್ಲ. ವಾಸ್ತವವಾಗಿ, ΔFosB ವಯಸ್ಕ ಮೆದುಳಿನಲ್ಲಿ ಸಂಭವಿಸುವ ದೀರ್ಘಕಾಲೀನ ರೂಪಾಂತರವಾಗಿದೆ, ಇದು ದುರುಪಯೋಗದ ಔಷಧಿಗಳಿಗೆ ಪ್ರತಿಕ್ರಿಯೆಯಾಗಿ ಮಾತ್ರವಲ್ಲದೆ, ಯಾವುದೇ ಇತರ ಗೊಂದಲಕ್ಕೂ (ಗಾಯಗಳನ್ನು ಒಳಗೊಂಡಿಲ್ಲ) ಸಹ. ಈ ವ್ಯತ್ಯಾಸವನ್ನು ವಿವರಿಸಲು ವ್ಯಸನ ಮತ್ತು ಕಲಿಕೆ ಮತ್ತು ಸ್ಮರಣಶಕ್ತಿ ಕ್ಷೇತ್ರಗಳಲ್ಲಿ ಎರಡು ಪ್ರಸ್ತಾಪಗಳು ವಿಕಸನಗೊಂಡಿವೆ.
ಒಂದು ಸಾಧ್ಯತೆಯೆಂದರೆ, ΔFosB ಅಥವಾ ಇತರ ಪ್ರತಿಲೇಖನ ಅಂಶಗಳ ಮೂಲಕ (ಉದಾ. CREB) ಮಧ್ಯಸ್ಥಿಕೆ ವಹಿಸುವಂತಹ ಜೀನ್ ಅಭಿವ್ಯಕ್ತಿಯಲ್ಲಿನ ಹೆಚ್ಚು ಅಸ್ಥಿರ ಬದಲಾವಣೆಗಳು ನರಕೋಶದ ರೂಪವಿಜ್ಞಾನ ಮತ್ತು ಸಿನಾಪ್ಟಿಕ್ ರಚನೆಯಲ್ಲಿ ಹೆಚ್ಚು ದೀರ್ಘಕಾಲೀನ ಬದಲಾವಣೆಗಳನ್ನು ಮಧ್ಯಸ್ಥಿಕೆ ವಹಿಸಬಹುದು. ಉದಾಹರಣೆಗೆ, ಡೆಂಡ್ರೈಟಿಕ್ ಸ್ಪೈನ್ಗಳ ಸಾಂದ್ರತೆಯ ಹೆಚ್ಚಳ (ವಿಶೇಷವಾಗಿ ಎರಡು ತಲೆಯ ಸ್ಪೈನ್ಗಳ ಹೆಚ್ಚಳ) ದೀರ್ಘಾವಧಿಯ ಸಾಮರ್ಥ್ಯದ ಸಮಯದಲ್ಲಿ ಹಿಪೊಕ್ಯಾಂಪಲ್ ಪಿರಮಿಡಲ್ ನ್ಯೂರಾನ್ಗಳಲ್ಲಿ ಗ್ಲುಟಾಮೇಟರ್ಜಿಕ್ ಸಿನಾಪ್ಸಸ್ಗಳ ಹೆಚ್ಚಿದ ಪರಿಣಾಮಕಾರಿತ್ವದೊಂದಿಗೆ ಇರುತ್ತದೆ (38–40), ಮತ್ತು ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಗಳ ಮಧ್ಯಮ ಸ್ಪೈನಿ ನ್ಯೂರಾನ್ಗಳ ಮಟ್ಟದಲ್ಲಿ ಮಧ್ಯಸ್ಥಿಕೆ ವಹಿಸಿದ ಕೊಕೇನ್ಗೆ ವರ್ಧಿತ ವರ್ತನೆಯ ಸಂವೇದನೆಗೆ ಸಮಾನಾಂತರವಾಗಿರುತ್ತದೆ (41). ನಡವಳಿಕೆಯಲ್ಲಿ ಹೆಚ್ಚು ಸ್ಥಿರವಾದ ಬದಲಾವಣೆಗಳಿಗೆ ಕಾರಣವಾಗಲು ಅಂತಹ ರಚನಾತ್ಮಕ ಬದಲಾವಣೆಗಳು ಸಾಕಷ್ಟು ದೀರ್ಘಕಾಲೀನವಾಗಿವೆಯೇ ಎಂದು ತಿಳಿದಿಲ್ಲ, ಆದಾಗ್ಯೂ ಎರಡನೆಯದು ಕನಿಷ್ಠ 1 ತಿಂಗಳ ಔಷಧ ಹಿಂತೆಗೆದುಕೊಳ್ಳುವಿಕೆಯವರೆಗೆ ಇರುತ್ತದೆ. ಇತ್ತೀಚಿನ ಪುರಾವೆಗಳು ΔFosB ಮತ್ತು ಅದರ Cdk5 ಪ್ರಚೋದನೆಯು ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಗಳಲ್ಲಿನ ಸಿನಾಪ್ಟಿಕ್ ರಚನೆಯಲ್ಲಿ ಔಷಧ-ಪ್ರೇರಿತ ಬದಲಾವಣೆಗಳಲ್ಲಿ ಒಂದು ಮಧ್ಯವರ್ತಿಯಾಗಿರುವ ಸಾಧ್ಯತೆಯನ್ನು ಹೆಚ್ಚಿಸುತ್ತದೆ (ಚಿತ್ರ 4).‡‡ ಹೀಗಾಗಿ, ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಗಳಿಗೆ Cdk5 ಪ್ರತಿರೋಧಕದ ದ್ರಾವಣವು ಈ ಪ್ರದೇಶದಲ್ಲಿ ಡೆಂಡ್ರಿಟಿಕ್ ಬೆನ್ನುಮೂಳೆಯ ಸಾಂದ್ರತೆಯನ್ನು ಹೆಚ್ಚಿಸಲು ಕೊಕೇನ್ ಅನ್ನು ಪದೇ ಪದೇ ಒಡ್ಡಿಕೊಳ್ಳುವ ಸಾಮರ್ಥ್ಯವನ್ನು ತಡೆಯುತ್ತದೆ. ಮೆದುಳಿನಲ್ಲಿ ಸಮೃದ್ಧವಾಗಿರುವ Cdk5 ನರ ರಚನೆ ಮತ್ತು ಬೆಳವಣಿಗೆಯನ್ನು ನಿಯಂತ್ರಿಸುತ್ತದೆ ಎಂಬ ದೃಷ್ಟಿಕೋನಕ್ಕೆ ಇದು ಸ್ಥಿರವಾಗಿದೆ (ಉಲ್ಲೇಖಗಳು 36 ಮತ್ತು 37 ನೋಡಿ). ನರಕೋಶ ರೂಪವಿಜ್ಞಾನದಲ್ಲಿನ ಅಂತಹ ಬದಲಾವಣೆಗಳು ΔFosB ಸಿಗ್ನಲ್ ಅನ್ನು ಮೀರಿಸಬಹುದು ಎಂದು ಯಾವುದೇ ರೀತಿಯಲ್ಲಿ ಸಾಬೀತಾಗಿಲ್ಲದಿದ್ದರೂ ಸಾಧ್ಯವಿದೆ.
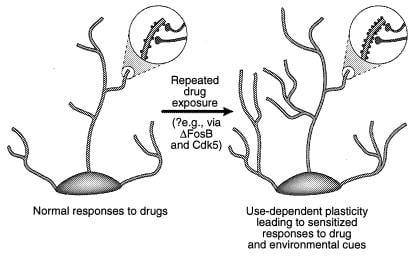
ಚಿತ್ರ 4
ದುರುಪಯೋಗದ drugs ಷಧಿಗಳಿಂದ ಡೆಂಡ್ರೈಟಿಕ್ ರಚನೆಯ ನಿಯಂತ್ರಣ. ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ ಮತ್ತು ಪ್ರಿಫ್ರಂಟಲ್ ಕಾರ್ಟೆಕ್ಸ್ (41) ನಲ್ಲಿ ಕೊಕೇನ್ ನೊಂದಿಗೆ ಗಮನಿಸಿದಂತೆ, ದುರುಪಯೋಗದ drug ಷಧಿಗೆ ದೀರ್ಘಕಾಲದವರೆಗೆ ಒಡ್ಡಿಕೊಂಡ ನಂತರ ನರಕೋಶದ ಡೆಂಡ್ರೈಟಿಕ್ ಮರದ ವಿಸ್ತರಣೆಯನ್ನು ತೋರಿಸಲಾಗಿದೆ. ವರ್ಧನೆಯ ಪ್ರದೇಶಗಳು ಡೆಂಡ್ರೈಟಿಕ್ ಸ್ಪೈನ್ಗಳ ಹೆಚ್ಚಳವನ್ನು ತೋರಿಸುತ್ತವೆ, ಇದು ಸಕ್ರಿಯ ನರ ಟರ್ಮಿನಲ್ಗಳ ಜೊತೆಯಲ್ಲಿ ಸಂಭವಿಸುತ್ತದೆ ಎಂದು ಸೂಚಿಸಲಾಗಿದೆ. ಡೆಂಡ್ರೈಟಿಕ್ ಬೆನ್ನುಮೂಳೆಯ ಸಾಂದ್ರತೆಯ ಈ ಹೆಚ್ಚಳವನ್ನು osFosB ಮೂಲಕ ಮಧ್ಯಸ್ಥಿಕೆ ವಹಿಸಬಹುದು ಮತ್ತು ಅದರ ಪರಿಣಾಮವಾಗಿ ಸಿಡಿಕೆ 5 ಅನ್ನು ಪ್ರಚೋದಿಸಬಹುದು (ಪಠ್ಯವನ್ನು ನೋಡಿ). ಡೆಂಡ್ರೈಟಿಕ್ ರಚನೆಯಲ್ಲಿನ ಇಂತಹ ಬದಲಾವಣೆಗಳು, ಕೆಲವು ಕಲಿಕೆಯ ಮಾದರಿಗಳಲ್ಲಿ (ಉದಾ., ದೀರ್ಘಕಾಲೀನ ಸಾಮರ್ಥ್ಯ) ಕಂಡುಬರುವಂತೆಯೇ ಇರುತ್ತವೆ, ದುರುಪಯೋಗ ಅಥವಾ ಪರಿಸರ ಸೂಚನೆಗಳ drugs ಷಧಿಗಳಿಗೆ ದೀರ್ಘಕಾಲೀನ ಸಂವೇದನಾಶೀಲ ಪ್ರತಿಕ್ರಿಯೆಗಳನ್ನು ಮಧ್ಯಸ್ಥಿಕೆ ವಹಿಸಬಹುದು. [ರೆಫ್ನಿಂದ ಅನುಮತಿಯೊಂದಿಗೆ ಪುನರುತ್ಪಾದಿಸಲಾಗಿದೆ. 3 (ಕೃತಿಸ್ವಾಮ್ಯ 2001, ಮ್ಯಾಕ್ಮಿಲಿಯನ್ ಮ್ಯಾಗಜೀನ್ಸ್ ಲಿಮಿಟೆಡ್.)].
ಮತ್ತೊಂದು ಸಾಧ್ಯತೆಯೆಂದರೆ, ಪ್ರತಿಲೇಖನ ಅಂಶದ (ಉದಾ. ΔFosB, CREB) ಅಸ್ಥಿರ ಪ್ರಚೋದನೆಯು ಕ್ರೊಮ್ಯಾಟಿ n ನ ಮಾರ್ಪಾಡು ಮೂಲಕ ಜೀನ್ ಅಭಿವ್ಯಕ್ತಿಯಲ್ಲಿ ಹೆಚ್ಚು ಶಾಶ್ವತ ಬದಲಾವಣೆಗಳಿಗೆ ಕಾರಣವಾಗುತ್ತದೆ . ಇವು ಮತ್ತು ಇತರ ಹಲವು ಪ್ರತಿಲೇಖನ ಅಂಶಗಳು ಜೀನ್ನ ಸುತ್ತಮುತ್ತಲಿನ ಹಿಸ್ಟೋನ್ಗಳ ಅಸಿಟೈಲೇಷನ್ ಅಥವಾ ಡೀಅಸಿಟೈಲೇಷನ್ ಅನ್ನು ಕ್ರಮವಾಗಿ ಉತ್ತೇಜಿಸುವ ಮೂಲಕ ಗುರಿ ಜೀನ್ನ ಪ್ರತಿಲೇಖನವನ್ನು ಸಕ್ರಿಯಗೊಳಿಸುತ್ತವೆ ಅಥವಾ ನಿಗ್ರಹಿಸುತ್ತವೆ ಎಂದು ನಂಬಲಾಗಿದೆ (42). ಹಿಸ್ಟೋನ್ಗಳ ಅಂತಹ ಅಸಿಟೈಲೇಷನ್ ಮತ್ತು ಡೀಅಸಿಟೈಲೇಷನ್ ಸ್ಪಷ್ಟವಾಗಿ ಬಹಳ ವೇಗವಾಗಿ ಸಂಭವಿಸಬಹುದಾದರೂ, ΔFosB ಅಥವಾ CREB ಹಿಸ್ಟೋನ್ ಅಸಿಟೈಲೇಷನ್ ಅನ್ನು ನಿಯಂತ್ರಿಸುವ ಕಿಣ್ವಕ ಯಂತ್ರೋಪಕರಣಗಳಲ್ಲಿ ದೀರ್ಘಕಾಲೀನ ರೂಪಾಂತರಗಳನ್ನು ಉತ್ಪಾದಿಸುವ ಸಾಧ್ಯತೆಯಿದೆ. ಅಭಿವೃದ್ಧಿಯ ಸಮಯದಲ್ಲಿ ಸಂಭವಿಸುವ ಜೀನ್ ಪ್ರತಿಲೇಖನದಲ್ಲಿನ ಶಾಶ್ವತ ಬದಲಾವಣೆಗಳಲ್ಲಿ ಸೂಚಿಸಲಾದ ಕ್ರೊಮಾಟಿನ್ನ ಇತರ ಮಾರ್ಪಾಡುಗಳನ್ನು (ಉದಾ. DNA ಅಥವಾ ಹಿಸ್ಟೋನ್ ಮೆತಿಲೀಕರಣ) ನಿಯಂತ್ರಿಸುವ ಮೂಲಕ ಜೀನ್ ಅಭಿವ್ಯಕ್ತಿಯಲ್ಲಿ ದೀರ್ಘಕಾಲೀನ ಬದಲಾವಣೆಗಳನ್ನು ಉತ್ತೇಜಿಸಬಹುದು (ಉಲ್ಲೇಖಗಳು 42 ಮತ್ತು 43 ನೋಡಿ). ಈ ಸಾಧ್ಯತೆಗಳು ಊಹಾತ್ಮಕವಾಗಿಯೇ ಉಳಿದಿದ್ದರೂ, ದುರುಪಯೋಗದ ಔಷಧಕ್ಕೆ (ಅಥವಾ ಇತರ ಕೆಲವು ಗೊಂದಲಗಳಿಗೆ) ಅಸ್ಥಿರ ರೂಪಾಂತರಗಳು ಮೂಲಭೂತವಾಗಿ ಜೀವಿತಾವಧಿಯ ವರ್ತನೆಯ ಪರಿಣಾಮಗಳಿಗೆ ಕಾರಣವಾಗುವ ಕಾರ್ಯವಿಧಾನವನ್ನು ಅವು ಒದಗಿಸಬಹುದು.
ಉಲ್ಲೇಖಗಳು
- ↵
- ನೆಸ್ಲರ್ ಇಜೆ,
- ಹೋಪ್ ಬಿಟಿ,
- ವಿಡ್ನೆಲ್ ಕೆ.ಎಲ್
(1993) ನ್ಯೂರಾನ್ 11: 995 - 1006.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಬರ್ಕ್ ಜೆಡಿ,
- ಹೈಮನ್ ಎಸ್ಇ
(2000) ನ್ಯೂರಾನ್ 25: 515 - 532.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ನೆಸ್ಲರ್ ಇಜೆ
(2001) ನ್ಯಾಟ್ ರೆವ್ ನ್ಯೂರೋಸಿ 2: 119 - 128.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಕಾರ್ಲೆಜನ್ ಡಬ್ಲ್ಯೂಎ ಜೂನಿಯರ್,
- ಥೋಮ್ ಜೆ,
- ಓಲ್ಸನ್ ವಿ.ಜಿ,
- ಲೇನ್-ಲಾಡ್ ಎಸ್ಬಿ,
- ಬ್ರಾಡ್ಕಿನ್ ಇಎಸ್,
- ಹಿರೋ ಎನ್,
- ಡುಮನ್ ಆರ್.ಎಸ್.,
- ನೆವ್ ಆರ್ಎಲ್,
- ನೆಸ್ಲರ್ ಇಜೆ
(1998) ವಿಜ್ಞಾನ 282: 2272 - 2275.
-
- ಒ'ಡೊನೊವನ್ ಕೆಜೆ,
- ಟೂರ್ಟೆಲೊಟ್ಟೆ ಡಬ್ಲ್ಯೂಜಿ,
- ಮಿಲ್ಬ್ರಾಂಡ್ ಜೆ,
- ಬರಾಬನ್ ಜೆಎಂ
(1999) ಟ್ರೆಂಡ್ಗಳು ನ್ಯೂರೋಸಿ 22: 167 - 173.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಮ್ಯಾಕ್ಲರ್ ಎಸ್.ಎ,
- ಕೊರುಟ್ಲಾ ಎಲ್,
- ಚಾ ಎಕ್ಸ್ವೈ,
- ಕೊಬ್ಬೆ ಎಮ್ಜೆ,
- ಫೌರ್ನಿಯರ್ ಕೆಎಂ,
- ಬೋವರ್ಸ್ ಎಂ.ಎಸ್.,
- ಕಾಲಿವಾಸ್ ಪಿಡಬ್ಲ್ಯೂ
(2000) ಜೆ ನ್ಯೂರೋಸಿ 20: 6210 - 6217.
- ↵
- ಮೋರ್ಗನ್ ಜೆಐ,
- ಕರ್ರನ್ ಟಿ
(1995) ಟ್ರೆಂಡ್ಗಳು ನ್ಯೂರೋಸಿ 18: 66 - 67.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಯಂಗ್ ಎಸ್ಟಿ,
- ಪೊರಿನೊ ಎಲ್ಜೆ,
- ಇದರೋಲಾ ಎಂ.ಜೆ.
(1991) ಪ್ರೊಕ್ ನ್ಯಾಟ್ ಅಕಾಡ್ ಸೈ ಯುಎಸ್ಎ 88: 1291 - 1295.
-
- ಗ್ರೇಬಿಯೆಲ್ ಎಎಮ್,
- ಮೊರಟಲ್ಲಾ ಆರ್,
- ರಾಬರ್ಟ್ಸನ್ ಎಚ್.ಎ.
(1990) ಪ್ರೊಕ್ ನ್ಯಾಟ್ ಅಕಾಡ್ ಸೈ ಯುಎಸ್ಎ 87: 6912 - 6916.
-
- ಹೋಪ್ ಬಿ,
- ಕೊಸೊಫ್ಸ್ಕಿ ಬಿ,
- ಹೈಮನ್ ಎಸ್ಇ,
- ನೆಸ್ಲರ್ ಇಜೆ
(1992) ಪ್ರೊಕ್ ನ್ಯಾಟ್ ಅಕಾಡ್ ಸೈ ಯುಎಸ್ಎ 89: 5764 - 5768.
- ↵
- ಕೆಲ್ಜ್ ಎಂಬಿ,
- ನೆಸ್ಲರ್ ಇಜೆ
(2000) ಕರ್ರ್ ಓಪಿನ್ ನ್ಯೂರೋಲ್ 13: 715 - 720.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಕೂಬ್ ಜಿಎಫ್,
- ಸನ್ನಾ ಪಿಪಿ,
- ಬ್ಲೂಮ್ ಎಫ್ಇ
(1998) ನ್ಯೂರಾನ್ 21: 467 - 476.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಬುದ್ಧಿವಂತ ಆರ್.ಎ.
(1998) ಆಲ್ಕೊಹಾಲ್ ಅವಲಂಬನೆ 51: 13 - 22.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಹೋಪ್ ಬಿಟಿ,
- ನೈ ಹೆಚ್ಇ,
- ಕೆಲ್ಜ್ ಎಂಬಿ,
- ಸ್ವಯಂ ಡಿಡಬ್ಲ್ಯೂ,
- ಇದರೋಲಾ ಎಮ್ಜೆ,
- ನಕಬೆಪ್ಪು ವೈ,
- ಡುಮನ್ ಆರ್.ಎಸ್.,
- ನೆಸ್ಲರ್ ಇಜೆ
(1994) ನ್ಯೂರಾನ್ 13: 1235 - 1244.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ನೈ ಎಚ್,
- ಹೋಪ್ ಬಿಟಿ,
- ಕೆಲ್ಜ್ ಎಂ,
- ಇದಾರೊಲಾ ಎಮ್,
- ನೆಸ್ಲರ್ ಇಜೆ
(1995) ಜೆ ಫಾರ್ಮಾಕೋಲ್ ಎಕ್ಸ್ಪ್ರೆಸ್ ಥರ್ 275: 1671 - 1680.
-
- ನೈ ಹೆಚ್ಇ,
- ನೆಸ್ಲರ್ ಇಜೆ
(1996) ಮೋಲ್ ಫಾರ್ಮಾಕೋಲ್ 49: 636 - 645.
- ↵
- ಮೊರಟಲ್ಲಾ ಆರ್,
- ಎಲಿಬೋಲ್ ಬಿ,
- ವ್ಯಾಲೆಜೊ ಎಂ,
- ಗ್ರೇಬಿಯೆಲ್ ಎ.ಎಂ.
(1996) ನ್ಯೂರಾನ್ 17: 147 - 156.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಪಿಚ್ ಇಎಂ,
- ಪಾಗ್ಲಿಯುಸಿ ಎಸ್ಆರ್,
- ಟೆಸ್ಸಾರಿ ಎಮ್,
- ತಾಲಾಬೋಟ್-ಐಯರ್ ಡಿ,
- ಹೂಫ್ಟ್ ವ್ಯಾನ್ ಹುಯಿಜ್ಡ್ಡುಯಿಜೆನ್ ಆರ್,
- ಚಿಮೌಲೆರಾ ಸಿ
(1997) ವಿಜ್ಞಾನ 275: 83 - 86.
- ↵
- ಚೆನ್ ಜೆಎಸ್,
- ನೈ ಹೆಚ್ಇ,
- ಕೆಲ್ಜ್ ಎಂಬಿ,
- ಹಿರೋ ಎನ್,
- ನಕಬೆಪ್ಪು ವೈ,
- ಹೋಪ್ ಬಿಟಿ,
- ನೆಸ್ಲರ್ ಇಜೆ
(1995) ಮೋಲ್ ಫಾರ್ಮಾಕೋಲ್ 48: 880 - 889.
- ↵
- ಹಿರೋ ಎನ್,
- ಬ್ರೌನ್ ಜೆ,
- ಯೆ ಎಚ್,
- ಸೌದೌ ಎಫ್,
- ವೈದ್ಯ ವಿ.ಎ,
- ಡುಮನ್ ಆರ್.ಎಸ್.,
- ಗ್ರೀನ್ಬರ್ಗ್ ಎಂಇ,
- ನೆಸ್ಲರ್ ಇಜೆ
(1998) ಜೆ ನ್ಯೂರೋಸಿ 18: 6952 - 6962.
- ↵
- ಚೆನ್ ಜೆ,
- ಕೆಲ್ಜ್ ಎಂಬಿ,
- ಹೋಪ್ ಬಿಟಿ,
- ನಕಬೆಪ್ಪು ವೈ,
- ನೆಸ್ಲರ್ ಇಜೆ
(1997) ಜೆ ನ್ಯೂರೋಸಿ 17: 4933 - 4941.
- ↵
- ಹಿರೋ ಎನ್,
- ಬ್ರೌನ್ ಜೆ,
- ಹೈಲೆ ಸಿ,
- ಯೆ ಎಚ್,
- ಗ್ರೀನ್ಬರ್ಗ್ ಎಂಇ,
- ನೆಸ್ಲರ್ ಇಜೆ
(1997) ಪ್ರೊಕ್ ನ್ಯಾಟ್ ಅಕಾಡ್ ಸೈ ಯುಎಸ್ಎ 94: 10397 - 10402.
- ↵
- ಫಿಯೆನ್ಬರ್ಗ್ ಎಎ,
- ಹಿರೋ ಎನ್,
- ಮೆರ್ಮೆಲ್ಸ್ಟೈನ್ ಪಿ,
- ಹಾಡು ಡಬ್ಲ್ಯೂಜೆ,
- ಸ್ನೈಡರ್ ಜಿಎಲ್,
- ನಿಶಿ ಎ,
- ಚೆರಮಿ ಎ,
- ಒ'ಕಲ್ಲಾಗನ್ ಜೆಪಿ,
- ಮಿಲ್ಲರ್ ಡಿ,
- ಕೋಲ್ ಡಿಜಿ,
- ಮತ್ತು ಇತರರು.
(1998) ವಿಜ್ಞಾನ 281: 838 - 842.
- ↵
- ಹಿರೋ ಎನ್,
- ಫೀನ್ಬರ್ಗ್ ಎ,
- ಹೈಲೆ ಸಿ,
- ಗ್ರೆನಾರ್ಡ್ ಪಿ,
- ನೆಸ್ಲರ್ ಇಜೆ
(1999) ಯುರ್ ಜೆ ನ್ಯೂರೋಸಿ 11: 1114 - 1118.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಗ್ರೆನಾರ್ಡ್ ಪಿ,
- ಅಲೆನ್ ಪಿಬಿ,
- ನಾಯರ್ನ್ ಎಸಿ
(1999) ನ್ಯೂರಾನ್ 23: 435 - 447.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಬಿಬ್ ಜೆಎ,
- ಸ್ನೈಡರ್ ಜಿಎಲ್,
- ನಿಶಿ ಎ,
- ಯಾನ್ ಝಡ್,
- ಮೈಜರ್ ಎಲ್,
- ಫಿಯೆನ್ಬರ್ಗ್ ಎಎ,
- ತ್ಸೈ ಎಲ್ಹೆಚ್,
- ಕ್ವಾನ್ ವೈಟಿ,
- ಜಿರಾಲ್ಟ್ ಜೆಎ,
- ಸೆರ್ನಿಕ್ ಎಜೆ,
- ಮತ್ತು ಇತರರು.
(1999) ನೇಚರ್ (ಲಂಡನ್) 402: 669 - 671.
- ↵
- ಚೆನ್ ಜೆಎಸ್,
- ಕೆಲ್ಜ್ ಎಂಬಿ,
- G ೆಂಗ್ ಜಿಕ್ಯೂ,
- ಸಕೈ ಎನ್,
- ಸ್ಟೆಫೆನ್ ಸಿ,
- ಶಾಕೆಟ್ ಪಿಇ,
- ಪಿಕ್ಸಿಯೊಟ್ಟೊ ಎಂ,
- ಡುಮನ್ ಆರ್.ಎಸ್.,
- ನೆಸ್ಲರ್ ಇಜೆ
(1998) ಮೋಲ್ ಫಾರ್ಮಾಕೋಲ್ 54: 495 - 503.
- ↵
- ಕೆಲ್ಜ್ ಎಂಬಿ,
- ಚೆನ್ ಜೆಎಸ್,
- ಕಾರ್ಲೆಜನ್ ಡಬ್ಲ್ಯೂಎ,
- ವಿಸ್ಲರ್ ಕೆ,
- ಗಿಲ್ಡೆನ್ ಎಲ್,
- ಬೆಕ್ಮನ್ ಎಎಮ್,
- ಸ್ಟೆಫೆನ್ ಸಿ,
- ಜಾಂಗ್ ವೈಜೆ,
- ಮರೊಟ್ಟಿ ಎಲ್,
- ಸ್ವಯಂ ಎಸ್ಡಬ್ಲ್ಯೂ,
- ಮತ್ತು ಇತರರು.
(1999) ನೇಚರ್ (ಲಂಡನ್) 401: 272 - 276.
- ↵
- ಡೊಬ್ರಾಜನ್ಸ್ಕಿ ಪಿ,
- ನೊಗುಚಿ ಟಿ,
- ಕೋವರಿ ಕೆ,
- ರಿ izz ೊ ಸಿಎ,
- ಲಾಜೊ ಪಿಎಸ್,
- ಬ್ರಾವೋ ಆರ್
(1991) ಮೋಲ್ ಸೆಲ್ ಬಯೋಲ್ 11: 5470 - 5478.
-
- ನಕಬೆಪ್ಪು ವೈ,
- ನಾಥನ್ಸ್ ಡಿ
(1991) ಸೆಲ್ 64: 751 - 759.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಯೆನ್ ಜೆ,
- ಬುದ್ಧಿವಂತಿಕೆ ಆರ್ಎಂ,
- ಟ್ರಾಟ್ನರ್ I,
- ವರ್ಮಾ ಐ.ಎಂ.
(1991) ಪ್ರೊಕ್ ನ್ಯಾಟ್ ಅಕಾಡ್ ಸೈ ಯುಎಸ್ಎ 88: 5077 - 5081.
- ↵
- ವೈಟ್ ಎಫ್ಜೆ,
- ಹೂ ಎಕ್ಸ್ಟಿ,
- ಜಾಂಗ್ ಎಕ್ಸ್ಎಫ್,
- ತೋಳ ಎಂ.ಇ.
(1995) ಜೆ ಫಾರ್ಮಾಕೋಲ್ ಎಕ್ಸ್ಪ್ರೆಸ್ ಥರ್ 273: 445 - 454.
- ↵
- ಹೈಮನ್ ಎಸ್ಇ
(1996) ನ್ಯೂರಾನ್ 16: 901 - 904.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
-
- ಕ್ರೀಕ್ ಎಮ್ಜೆ
(1997) ಫಾರ್ಮಾಕೋಲ್ ಬಯೋಕೆಮ್ ಬೆಹವ್ 57: 551 - 569.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಶಿಪ್ಪೆನ್ಬರ್ಗ್ ಟಿಎಸ್,
- ರಿಯಾ ಡಬ್ಲ್ಯೂ
(1997) ಫಾರ್ಮಾಕೋಲ್ ಬಯೋಕೆಮ್ ಬೆಹವ್ 57: 449 - 455.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಚೆನ್ ಜೆಎಸ್,
- ಜಾಂಗ್ ವೈಜೆ,
- ಕೆಲ್ಜ್ ಎಂಬಿ,
- ಸ್ಟೆಫೆನ್ ಸಿ,
- ಆಂಗ್ ಇಎಸ್,
- G ೆಂಗ್ ಎಲ್,
- ನೆಸ್ಲರ್ ಇಜೆ
(2000) ಜೆ ನ್ಯೂರೋಸಿ 20: 8965 - 8971.
- ↵
- ಬಿಬ್ ಜೆಎ,
- ಚೆನ್ ಜೆಎಸ್,
- ಟೇಲರ್ ಜೆ.ಆರ್.,
- ಸ್ವೆನ್ನಿಂಗ್ಸ್ಸನ್ ಪಿ,
- ನಿಶಿ ಎ,
- ಸ್ನೈಡರ್ ಜಿಎಲ್,
- ಯಾನ್ ಝಡ್,
- ಸಗಾವಾ Z ಡ್ಕೆ,
- ನಾಯರ್ನ್ ಎಸಿ,
- ನೆಸ್ಲರ್ ಇಜೆ,
- ಮತ್ತು ಇತರರು.
(2001) ನೇಚರ್ (ಲಂಡನ್) 410: 376 - 380.
- ↵
- ಲುಷರ್ ಸಿ,
- ನಿಕೋಲ್ ಆರ್ಎ,
- ಮಾಲೆಂಕಾ ಆರ್ಸಿ,
- ಮುಲ್ಲರ್ ಡಿ
(2000) ನ್ಯಾಟ್ ನ್ಯೂರೋಸಿ 3: 545 - 550.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
-
- ಮಾಲಿನೋವ್ ಆರ್,
- ಮೈನೆನ್ ZF,
- ಹಯಾಶಿ ವೈ
(2000) ಕರ್ರ್ ಓಪಿನ್ ನ್ಯೂರೋಬಿಯೋಲ್ 10: 352 - 357.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
- ↵
- ಸ್ಕ್ಯಾನ್ನೆವಿನ್ ಆರ್ಹೆಚ್,
- ಹುಗನೀರ್ ಆರ್.ಎಲ್
(2000) ನ್ಯಾಟ್ ರೆವ್ ನ್ಯೂರೋಸಿ 1: 133 - 141.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
ರಾಬಿನ್ಸನ್, TE & Kolb, B. (1999) (1997) Eur. ಜೆ. ನ್ಯೂರೋಸ್ಕಿ. 11, 1598–1604.
- ↵
- ಕ್ಯಾರಿ ಎಂ,
- ಸಣ್ಣ ಎಸ್.ಟಿ.
(2000) ಯುಕ್ಯಾರಿಯೋಟ್ಗಳಲ್ಲಿ ಪ್ರತಿಲೇಖನ ನಿಯಂತ್ರಣ (ಕೋಲ್ಡ್ ಸ್ಪ್ರಿಂಗ್ ಹಾರ್ಬರ್ ಲ್ಯಾಬ್. ಪ್ರೆಸ್, ಪ್ಲೇನ್ವ್ಯೂ, NY).
- ↵
- ಸ್ಪೆನ್ಸರ್ ವಿಎ,
- ಡೇವಿ ಜೆ.ಆರ್
(1999) ಜೀನ್ 240: 1 - 12.
ಕ್ರಾಸ್ರೆಫ್ ಮೆಡ್ಲೈನ್ ವೆಬ್ ಆಫ್ ಸೈನ್ಸ್
 ಫೇಸ್ಬುಕ್
 ಟ್ವಿಟರ್
- Google+ ಗೆ
 CiteULike
 ರುಚಿಕರವಾದ
 ನಿಮ್ಮ
 ಮೆಂಡಲೆ
ಈ ಲೇಖನವನ್ನು ಉಲ್ಲೇಖಿಸಿ ಹೈವೈರ್ ಪ್ರೆಸ್-ಹೋಸ್ಟ್ ಮಾಡಿದ ಲೇಖನಗಳು
- ನೈಸರ್ಗಿಕ ಮತ್ತು ಡ್ರಗ್ ರಿವಾರ್ಡ್ಸ್ ಆಕ್ಟ್ ನ ಸಾಮಾನ್ಯ ನರ ಪ್ಲಾಸ್ಟಿಕ್ತೆ {ಡೆಲ್ಟಾ} ಫೋಸ್ಬಿ ಜೊತೆಗೆ ಪ್ರಮುಖ ಮಧ್ಯವರ್ತಿಯಾಗಿ ಕಾರ್ಯವಿಧಾನ ಜೆ. ನ್ಯೂರೋಸಿ. 2013 33 (8) 3434-3442
- ಡ್ರಗ್ಸ್, ಕ್ರೈಮ್ ಮತ್ತು ಎಪಿಜೆನೆಟಿಕ್ಸ್ ಆಫ್ ಹೆಡೋನಿಕ್ ಅಲೋಸ್ಟಾಸಿಸ್ ಜರ್ನಲ್ ಆಫ್ ಕಾಂಟೆಂಪರರಿ ಕ್ರಿಮಿನಲ್ ಜಸ್ಟೀಸ್ 2012 28 (3) 314-328
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಅಮೂರ್ತ
- ಪೂರ್ಣ ಪಠ್ಯ (HTML)
- ಪೂರ್ಣ ಪಠ್ಯ (ಪಿಡಿಎಫ್)
- ಡಾರ್ಸಲ್ ರೂಟ್ ಗ್ಯಾಂಗ್ಲಿಯಾ ನ್ಯೂರಾನ್ಗಳಿಂದ ಪಡೆದ ಎಫ್ಎಕ್ಸ್ಎನ್ಯುಎಮ್ಎಕ್ಸ್ ಕೋಶಗಳಲ್ಲಿನ ಎಕ್ಸ್ಟ್ರಾಸೆಲ್ಯುಲರ್ ಸಿಗ್ನಲ್-ರೆಗ್ಯುಲೇಟೆಡ್ ಕೈನೇಸ್ ಎಕ್ಸ್ಎನ್ಯುಎಮ್ಎಕ್ಸ್ / ಎಕ್ಸ್ಎನ್ಯುಎಮ್ಎಕ್ಸ್ ಮೂಲಕ ಇ-ಇಪ್ಪತ್ತು ಆರು ತರಹದ ಪ್ರತಿಲೇಖನ ಅಂಶವನ್ನು ಮಾರ್ಫೈನ್ ಸಕ್ರಿಯಗೊಳಿಸುತ್ತದೆ. ಜೆ. ಫಾರ್ಮಾಕೋಲ್. ಎಕ್ಸ್ಪ್ರೆಸ್. ಥೇರ್. 2012 342 (1) 41-52
- ಗೇಟ್ವೇ ಡ್ರಗ್ಗಾಗಿ ಆಣ್ವಿಕ ಕಾರ್ಯವಿಧಾನ: ಕೊಕೇನ್ನಿಂದ ನಿಕೋಟಿನ್ ಪ್ರೈಮ್ ಜೀನ್ ಅಭಿವ್ಯಕ್ತಿ ಪ್ರಾರಂಭಿಸಿದ ಎಪಿಜೆನೆಟಿಕ್ ಬದಲಾವಣೆಗಳು Sci Transl Med 2011 3 (107) 107ra109
- ಇಲಿಗಳಲ್ಲಿನ ಮಿಡ್ಬ್ರೈನ್ ಡೋಪಮೈನ್ ನ್ಯೂರಾನ್ಗಳಲ್ಲಿ VGLUT2 ನಷ್ಟವಾದ ನಂತರ ವರ್ಧಿತ ಸುಕ್ರೋಸ್ ಮತ್ತು ಕೊಕೇನ್ ಸ್ವ-ಆಡಳಿತ ಮತ್ತು ಕ್ಯೂ-ಇಂಡ್ಯೂಸ್ಡ್ ಡ್ರಗ್ ಸೀಕಿಂಗ್ ಜೆ. ನ್ಯೂರೋಸಿ. 2011 31 (35) 12593-12603
- ದೀರ್ಘಕಾಲದ ಮಧ್ಯಂತರ ಹೈಪೊಕ್ಸಿಯಾ ಕೇಂದ್ರೀಯ ಸ್ವನಿಯಂತ್ರಿತ ಪ್ರದೇಶಗಳಲ್ಲಿ ರಕ್ತದೊತ್ತಡ ಮತ್ತು FosB / {Delta} FosB ಯ ಅಭಿವ್ಯಕ್ತಿ ಹೆಚ್ಚಿಸುತ್ತದೆ ಆಮ್. ಜೆ. ಫಿಸಿಯೋಲ್. ರೆಗುಲ್. ಇಂಟಿಗ್ರರ್. ಕಾಂಪ್. ಫಿಸಿಯೋಲ್. 2011 301 (1) R131-R139
- GPR37 / PAEL ಗ್ರಾಹಕದ ಅನುಪಸ್ಥಿತಿಯು ಸ್ಟ್ರೈಟಲ್ ಅಕ್ಟ್ ಮತ್ತು ERK2 ಫಾಸ್ಫೊರಿಲೇಷನ್, {ಡೆಲ್ಟಾ} FosB ಅಭಿವ್ಯಕ್ತಿ ಮತ್ತು ಆಂಫೆಟಮೈನ್ ಮತ್ತು ಕೊಕೇನ್ಗೆ ನಿಯಮಾಧೀನ ಸ್ಥಳ ಆದ್ಯತೆಯನ್ನು ದುರ್ಬಲಗೊಳಿಸುತ್ತದೆ FASEB J. 2011 25 (6) 2071-2081
- ಆರಂಭಿಕ ಆಲ್ಕೊಹಾಲ್ ಮಾನ್ಯತೆ ಮತ್ತು ಆಣ್ವಿಕ ಸಹಿಷ್ಣುತೆಯ ನಿರಂತರತೆಯ ನಡುವಿನ ಸಂಬಂಧವು ರೇಖೀಯವಲ್ಲದ ಜೆ. ನ್ಯೂರೋಸಿ. 2011 31 (7) 2436-2446
- ವಿವೋ ಬಯೋಲ್ಯುಮಿನೆನ್ಸಿನ್ಸ್ ಇಮೇಜಿಂಗ್ ರೆಡೋವಾಸ್ಕುಲರ್ ಅಧಿಕ ರಕ್ತದೊತ್ತಡದೊಂದಿಗೆ ಇಲಿಗಳ ಪ್ಯಾರಾವೆಂಟ್ರಿಕ್ಯುಲರ್ ನ್ಯೂಕ್ಲಿಯಸ್ನಲ್ಲಿ ರೆಡಾಕ್ಸ್-ನಿಯಂತ್ರಿತ ಆಕ್ಟಿವೇಟರ್ ಪ್ರೋಟೀನ್-ಎಕ್ಸ್ಎನ್ಎಮ್ಎಕ್ಸ್ ಸಕ್ರಿಯಗೊಳಿಸುವಿಕೆಯನ್ನು ಬಹಿರಂಗಪಡಿಸುತ್ತದೆ ಅಧಿಕ ರಕ್ತದೊತ್ತಡ 2011 57 (2) 289-297
- {ಡೆಲ್ಟಾ} FosB ಯ ಸ್ಟ್ರೈಟಲ್ ಅತಿಯಾದ ಒತ್ತಡ ದೀರ್ಘಕಾಲದ ಲೆವೊಡೋಪಾ-ಪ್ರೇರಿತ ಅನೈಚ್ ary ಿಕ ಚಲನೆಗಳನ್ನು ಪುನರುತ್ಪಾದಿಸುತ್ತದೆ ಜೆ. ನ್ಯೂರೋಸಿ. 2010 30 (21) 7335-7343
- ಪ್ರಮುಖ ಮಾನಸಿಕ ಅಸ್ವಸ್ಥತೆಗಳಲ್ಲಿನ ಪರಿಸರ ಪ್ರಭಾವಗಳ ಎಪಿಜೆನೆಟಿಕ್ ಮಧ್ಯಸ್ಥಿಕೆ ಸ್ಕಿಜೋಫ್ರ್ ಬುಲ್ 2009 35 (6) 1045-1056
- ಜೀವಂತ ಮಿದುಳಿನಲ್ಲಿ ಆಂಫೆಟಮೈನ್ಗೆ ದೀರ್ಘಕಾಲದ ಮಾನ್ಯತೆಯ ನಿರ್ದಿಷ್ಟ ಪತ್ತೆಗಾಗಿ ಡಿಎನ್ಎ ಆಧಾರಿತ ಎಂಆರ್ಐ ಪ್ರೋಬ್ಸ್ ಜೆ. ನ್ಯೂರೋಸಿ. 2009 29 (34) 10663-10670
- ಕೊಕೇನ್-ಹಿಂತೆಗೆದುಕೊಂಡ ಇಲಿಗಳಲ್ಲಿ ಬದಲಾದ ಡೆಂಡ್ರೈಟಿಕ್ ಬೆನ್ನುಮೂಳೆಯ ಪ್ಲಾಸ್ಟಿಕ್ ಜೆ. ನ್ಯೂರೋಸಿ. 2009 29 (9) 2876-2884
- ಡ್ರೊಸೊಫಿಲಾದಲ್ಲಿನ ಅತಿಯಾದ ಒತ್ತಡದ ಪರದೆ ಎಪಿ-ಎಕ್ಸ್ಎನ್ಯುಎಮ್ಎಕ್ಸ್-ಅವಲಂಬಿತ ಅಭಿವೃದ್ಧಿ ಪ್ಲಾಸ್ಟಿಕ್ನ ನಿಯಂತ್ರಕವಾಗಿ ಜಿಎಸ್ಕೆ-ಎಕ್ಸ್ಎನ್ಯುಎಮ್ಎಕ್ಸ್ {ಬೀಟಾ} / ಶಾಗ್ಗಿಗಳ ನರಕೋಶದ ಪಾತ್ರಗಳನ್ನು ಗುರುತಿಸುತ್ತದೆ. ಜೆನೆಟಿಕ್ಸ್ 2008 180 (4) 2057-2071
- ಪ್ರತಿಲೇಖನ ಎಂಆರ್ಐ: ಜೀವಂತ ಮಿದುಳಿನ ಹೊಸ ನೋಟ ನರವಿಜ್ಞಾನಿ 2008 14 (5) 503-520
- {ಡೆಲ್ಟಾ Or ಆರ್ಬಿಟೋಫ್ರಂಟಲ್ ಕಾರ್ಟೆಕ್ಸ್ನಲ್ಲಿ ಫಾಸ್ಬಿ ಇಂಡಕ್ಷನ್ ಕೊಕೇನ್-ಪ್ರೇರಿತ ಅರಿವಿನ ಅಪಸಾಮಾನ್ಯ ಕ್ರಿಯೆಗೆ ಸಹಿಷ್ಣುತೆಯನ್ನು ಮಧ್ಯಸ್ಥಿಕೆ ವಹಿಸುತ್ತದೆ ಜೆ. ನ್ಯೂರೋಸಿ. 2007 27 (39) 10497-10507
- ಗ್ಲಿಯಲ್ ಸೆಲ್ ಲೈನ್-ಪಡೆದ ನ್ಯೂರೋಟ್ರೋಫಿಕ್ ಫ್ಯಾಕ್ಟರ್ ರೂಪಾಂತರಿತ ಇಲಿಗಳಲ್ಲಿ ಮೆಥಾಂಫೆಟಮೈನ್-ಬೇಡಿಕೆಯ ನಡವಳಿಕೆಯನ್ನು ಮರುಸ್ಥಾಪಿಸಲು ದುರ್ಬಲತೆಯನ್ನು ಸಹಿಸಿಕೊಳ್ಳುವುದು FASEB J. 2007 21 (9) 1994-2004
- ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯೂಂಬೆನ್ಸ್ನಲ್ಲಿನ {ಡೆಲ್ಟಾ} FosB ಆಹಾರ-ಬಲವರ್ಧಿತ ವಾದ್ಯಗಳ ವರ್ತನೆ ಮತ್ತು ಪ್ರೇರಣೆಯನ್ನು ನಿಯಂತ್ರಿಸುತ್ತದೆ ಜೆ. ನ್ಯೂರೋಸಿ. 2006 26 (36) 9196-9204
- ಫಾಸ್ಫೊರಿಲೇಷನ್ ಮೂಲಕ {ಡೆಲ್ಟಾ} ಫಾಸ್ಬಿ ಸ್ಥಿರತೆಯ ನಿಯಂತ್ರಣ. ಜೆ. ನ್ಯೂರೋಸಿ. 2006 26 (19) 5131-5142
- ಡೋಪಮೈನ್ ಡಿಎಕ್ಸ್ಎನ್ಯುಎಮ್ಎಕ್ಸ್ ರಿಸೆಪ್ಟರ್-ಒಳಗೊಂಡಿರುವ ಕೋಶಗಳಲ್ಲಿ ರೂಪಾಂತರಿತ ಎನ್ಎಂಡಿಎ ಗ್ರಾಹಕಗಳ ಅಭಿವ್ಯಕ್ತಿ ಕೊಕೇನ್ ಸಂವೇದನೆಯನ್ನು ತಡೆಯುತ್ತದೆ ಮತ್ತು ಕೊಕೇನ್ ಆದ್ಯತೆಯನ್ನು ಕಡಿಮೆ ಮಾಡುತ್ತದೆ ಜೆ. ನ್ಯೂರೋಸಿ. 2005 25 (28) 6651-6657
- ಡಿಎಕ್ಸ್ಎನ್ಯುಎಮ್ಎಕ್ಸ್ ಡೋಪಮೈನ್ ರಿಸೆಪ್ಟರ್ಗಳು ಮಧ್ಯಂತರ ಮಾರ್ಫೈನ್ ಆಡಳಿತದ ನಂತರ ರ್ಯಾಟ್ ಸ್ಟ್ರೈಟಂನಲ್ಲಿ {ಡೆಲ್ಟಾ} ಫಾಸ್ಬಿ ಇಂಡಕ್ಷನ್ ಜೆ. ಫಾರ್ಮಾಕೋಲ್. ಎಕ್ಸ್ಪ್ರೆಸ್. ಥೇರ್. 2005 314 (1) 148-154
- ಹೆಚ್ಚಿನ ಸ್ವಯಂಪ್ರೇರಿತ ಚಕ್ರ ಚಾಲನೆಯಲ್ಲಿರುವ ಚಟುವಟಿಕೆಗಾಗಿ ಇಲಿಗಳ ನ್ಯೂರೋಬಯಾಲಜಿ ಆಯ್ಕೆ ಮಾಡಲಾಗಿದೆ ಇಂಟಿಗ್ರರ್. ಕಾಂಪ್. ಬಯೋಲ್. 2005 45 (3) 438-455
- ಇಲಿ ಸುಪ್ರಾಪ್ಟಿಕ್ ನ್ಯೂಕ್ಲಿಯಸ್ ಮತ್ತು ಲ್ಯಾಮಿನಾ ಟರ್ಮಿನಲಿಸ್ ಪ್ರದೇಶದಲ್ಲಿ ಸಿ-ಫಾಸ್ ಮತ್ತು ಫಾಸ್ಬಿ ಕಲೆಗಳ ಮೇಲೆ ನೀರಿನ ಅಭಾವ ಮತ್ತು ಪುನರ್ಜಲೀಕರಣದ ಪರಿಣಾಮಗಳು ಆಮ್. ಜೆ. ಫಿಸಿಯೋಲ್. ರೆಗುಲ್. ಇಂಟಿಗ್ರರ್. ಕಾಂಪ್. ಫಿಸಿಯೋಲ್. 2005 288 (1) R311-R321
- ಆಸ್ಟಿಯೋಬ್ಲಾಸ್ಟ್ಗಳಲ್ಲಿ ಯಾಂತ್ರಿಕ ಒತ್ತಡದಿಂದ FosB / {Delta} FosB ಜೀನ್ನ ಪ್ರತಿಲೇಖನ ಇಂಡಕ್ಷನ್ ಜೆ ಬಯೋಲ್ ಕೆಮ್ 2004 279 (48) 49795-49803
- ದೀರ್ಘಕಾಲದ ಒತ್ತಡದ ನಂತರ ಬಹುಮಾನ-ಸಂಬಂಧಿತ ಮಿದುಳಿನ ರಚನೆಗಳಲ್ಲಿ {ಡೆಲ್ಟಾ} FosB ಯ ಇಂಡಕ್ಷನ್ ಜೆ. ನ್ಯೂರೋಸಿ. 2004 24 (47) 10594-10602
- ಸಿಮ್ಎಕ್ಸ್ಎನ್ಎಮ್ಎಕ್ಸ್ ಜೀನ್ ಡೋಸೇಜ್ ಇಲಿಗಳಲ್ಲಿನ ಆಹಾರದ ಕೊಬ್ಬನ್ನು ಹೆಚ್ಚಿಸಲು ಹೋಮಿಯೋಸ್ಟಾಟಿಕ್ ಫೀಡಿಂಗ್ ಪ್ರತಿಕ್ರಿಯೆಯನ್ನು ಮಾರ್ಪಡಿಸುತ್ತದೆ ಆಮ್. ಜೆ. ಫಿಸಿಯೋಲ್. ಎಂಡೋಕ್ರಿನಾಲ್. ಮೆಟಾಬ್. 2004 287 (1) E105-E113
- ಹೈಡ್ರೋಸ್ಟಾಟಿಕ್ ಒತ್ತಡಕ್ಕೆ ಪ್ರತಿಕ್ರಿಯೆಯಾಗಿ ಮಾನವ ಆಪ್ಟಿಕ್ ನರ ತಲೆ ಖಗೋಳಗಳಲ್ಲಿ ಜೀನ್ ಅಭಿವ್ಯಕ್ತಿಯ ಡಿಎನ್ಎ ಮೈಕ್ರೊಅರೇ ವಿಶ್ಲೇಷಣೆ ಫಿಸಿಯೋಲ್. ಜೀನೋಮಿಕ್ಸ್ 2004 17 (2) 157-169
- ಸೂಪರ್ಆಕ್ಸೈಡ್ ಕೇಂದ್ರ ನರಮಂಡಲದ ಸಕ್ರಿಯಗೊಳಿಸುವಿಕೆ ಮತ್ತು ಮಯೋಕಾರ್ಡಿಯಲ್ ಇನ್ಫಾರ್ಕ್ಷನ್-ಪ್ರೇರಿತ ಹೃದಯ ವೈಫಲ್ಯದ ಸಹಾನುಭೂತಿಯಲ್ಲಿ ತೊಡಗಿದೆ ಸರ್ಕ್. ರೆಸ್. 2004 94 (3) 402-409
- ಪುನರಾವರ್ತಿತ ಡೋಪಮಿನರ್ಜಿಕ್ ಪ್ರಚೋದನೆಗೆ ನ್ಯೂರೋಅಡಾಪ್ಟೇಶನ್ನಲ್ಲಿ ಅಡೆನೊಸಿನ್ ಎ 2 ಎ ಗ್ರಾಹಕಗಳು: ಪಾರ್ಕಿನ್ಸನ್ ಕಾಯಿಲೆಯಲ್ಲಿ ಡಿಸ್ಕಿನೇಶಿಯಸ್ ಚಿಕಿತ್ಸೆಗಾಗಿ ಪರಿಣಾಮಗಳು ನರವಿಜ್ಞಾನ 2003 61 (90116) S74-81
- ಕಪ್ಪೆಯಲ್ಲಿನ ಫಾಸ್-ಸಂಬಂಧಿತ ಪ್ರೋಟೀನ್ಗಳ ಸೈಟೋಪ್ಲಾಸ್ಮಿಕ್ ವರ್ಸಸ್ ನ್ಯೂಕ್ಲಿಯರ್ ಸ್ಥಳೀಕರಣ, ರಾಣಾ ಎಸ್ಕುಲೆಂಟಾ, ಟೆಸ್ಟಿಸ್: ಇನ್ ವಿವೋ ಮತ್ತು ಡೈರೆಕ್ಟ್ ಇನ್ ವಿಟ್ರೊ ಎಫೆಕ್ಟ್ ಆಫ್ ಗೊನಡೋಟ್ರೋಪಿನ್-ಬಿಡುಗಡೆ ಮಾಡುವ ಹಾರ್ಮೋನ್ ಅಗೊನಿಸ್ಟ್ ಬಯೋಲ್. ರಿಪ್ರೊಡ್. 2003 68 (3) 954-960
- ಕೊಕೇನ್ ಮತ್ತು ಆಂಫೆಟಮೈನ್ಗೆ ಪ್ರತಿಕ್ರಿಯೆಯಾಗಿ ಪೆರಿಯಾಡೋಲೆಸೆಂಟ್ ಮೈಸ್ ಶೋ ವರ್ಧಿತ ಡೆಲ್ಟಾ ಫಾಸ್ಬಿ ನಿಯಂತ್ರಣ ಜೆ. ನ್ಯೂರೋಸಿ. 2002 22 (21) 9155-9159
- ಡೆಲ್ಟಾ ಫಾಸ್ಬಿ ವ್ಹೀಲ್ ರನ್ನಿಂಗ್ ಅನ್ನು ನಿಯಂತ್ರಿಸುತ್ತದೆ ಜೆ. ನ್ಯೂರೋಸಿ. 2002 22 (18) 8133-8138
- ನ್ಯೂಕ್ಲಿಯಸ್ ಅಕ್ಯುಂಬೆನ್ಸ್ ಶೆಲ್ನಲ್ಲಿ CREB ಚಟುವಟಿಕೆಯು ಭಾವನಾತ್ಮಕ ಪ್ರಚೋದಕಗಳಿಗೆ ನಡವಳಿಕೆಯ ಪ್ರತಿಕ್ರಿಯೆಗಳ ಗೇಟಿಂಗ್ ಅನ್ನು ನಿಯಂತ್ರಿಸುತ್ತದೆ ಪ್ರೊಕ್. ನ್ಯಾಟ್ಲ್. ಅಕಾಡ್. ವಿಜ್ಞಾನ. USA 2002 99 (17) 11435-11440
- ಸೈಕೋಜೆನೊಮಿಕ್ಸ್: ಚಟವನ್ನು ಅರ್ಥಮಾಡಿಕೊಳ್ಳುವ ಅವಕಾಶಗಳು ಜೆ. ನ್ಯೂರೋಸಿ. 2001 21 (21) 8324-8327