PASTABOS: Kaip vėlesni tyrimai atskleis, „DeltaFosB“ yra įprastas molekulinis jungiklis priklausomybei nuo narkotikų ir elgesio. Tai transkripcijos faktorius, kuris reiškia, kad jis turi įtakos įjungiamiems ar išjungiamiems genams. Kaip teigiama kitur, priklausomybę sukeliantys vaistai užgrobia tik įprastus mechanizmus. Todėl kvaila teigti, kad elgesio priklausomybės negali egzistuoti.
Proc Natl Acad Sci US A. 2001 rugsėjo 25; 98 (20): 11042 – 11046.
doi: 10.1073 / pnas.191352698.
Eric J. Nestler *, Michel Barrot ir David W. Self
Teksaso universiteto Psichiatrijos ir pagrindinių neurologijos centras, Pietvakarių medicinos centras, 5323 Harry Hines Boulevard, Dalasas, TX 75390-9070
Abstraktus
Kai kurių elgesio sutrikimų, būdingų priklausomybei nuo narkotikų, ilgaamžiškumas leidžia manyti, kad neuronų genų raiškos reguliavimas gali būti susijęs su procesu, kuriuo piktnaudžiavimo narkotikai sukelia priklausomybės būseną. Vis daugiau įrodymų rodo, kad transkripcijos faktorius ΔFosB yra vienas iš mechanizmų, kuriuo piktnaudžiavimo narkotikai sukelia santykinai stabilius smegenų pokyčius, kurie prisideda prie priklausomybės fenotipo. ΔFosB , Fos transkripcijos faktorių šeimos narys, kaupiasi branduolio accumbens ir nugarinio dryžuotojo kūno (smegenų sričių, svarbių priklausomybei) neuronų pogrupyje po pakartotinio daugelio rūšių piktnaudžiavimo narkotikais vartojimo. Panašus ΔFosB kaupimasis vyksta po kompulsyvaus bėgimo, o tai rodo, kad ΔFosB gali kauptis reaguojant į daugelio tipų kompulsyvų elgesį . Svarbu tai, kad ΔFosB išlieka neuronuose santykinai ilgą laiką dėl savo nepaprasto stabilumo. Todėl ΔFosB yra molekulinis mechanizmas, galintis inicijuoti ir palaikyti genų raiškos pokyčius, kurie išlieka ilgai po to, kai narkotikų poveikis nutraukiamas . Tyrimai su indukuojamomis transgeninėmis pelėmis, kurios pernelyg ekspresuoja ΔFosB arba dominuojantį neigiamą baltymo inhibitorių, pateikia tiesioginių įrodymų, kad ΔFosB sukelia padidėjusį jautrumą piktnaudžiavimo narkotikais poveikiui elgesiui ir, galbūt, padidėjusį narkotikų paieškos elgesį. Šis darbas patvirtina požiūrį, kad ΔFosB veikia kaip ilgalaikis „molekulinis jungiklis“, kuris palaipsniui paverčia ūminį atsaką į vaistą santykinai stabiliomis adaptacijomis, kurios prisideda prie ilgalaikio neuroninio ir elgesio plastiškumo, kuris yra priklausomybės pagrindas.
Narkomanijos tyrimų tikslas - suprasti sudėtingus būdus, kuriais piktnaudžiavimo narkotikai keičia smegenis, kad sukeltų priklausomybę apibūdinančius elgesio sutrikimus. Vienas iš svarbiausių šios srities iššūkių yra nustatyti santykinai stabilius vaistų sukeltus smegenų pokyčius, kad būtų atsižvelgta į tuos elgesio sutrikimus, kurie yra ypač ilgaamžiai. Pavyzdžiui, žmogaus narkomanas gali patirti didesnę grįžimo riziką net ir po ilgų abstinencijos.
Šių elgesio sutrikimų stabilumas leidžia manyti, kad juos bent iš dalies gali sukelti genų raiškos pokyčiai (1–3). Remiantis šiuo požiūriu, pakartotinis piktnaudžiavimo narkotikais poveikis pakartotinai sutrikdo signalų perdavimą tam tikrose smegenų sinapsėse, kurios yra jautrios narkotikui. Tokie sutrikimai galiausiai perduoda signalus per viduląstelines pasiuntinių kaskadas į branduolį, kur jie pirmiausia inicijuoja, o vėliau palaiko specifinių genų raiškos pokyčius. Pagrindinis mechanizmas, kuriuo signalų perdavimo keliai veikia genų raišką, yra transkripcijos faktorių, baltymų, kurie jungiasi prie genų reguliavimo sričių ir modifikuoja jų transkripciją, reguliavimas.
Todėl vienas iš priklausomybės tyrimų tikslų buvo nustatyti transkripcijos veiksnius, kurie yra pakeisti galvos smegenų regionuose, susijusiuose su priklausomybe, po ilgalaikio piktnaudžiavimo narkotikais. Per pastarąjį dešimtmetį nustatyti keli tokie transkripcijos faktoriai (1 – 6). Šioje apžvalgoje daugiausia dėmesio skiriama vienam konkrečiam transkripcijos faktoriui, vadinamam ΔFosB.
ΔFosB indukcija piktnaudžiavimo narkotikais
FosB, kurį koduoja fosB genas, yra transkripcijos faktorių Fos šeimos narys, kuris apima ir c-Fos, FosB, Fra1 ir Fra2 (7). Šie Fos šeimos baltymai heterodimerizuojasi su Jun šeimos proteinais (c-Jun, JunB arba JunD), kad suformuotų aktyvius AP-1 (aktyvatoriaus baltymo-1) transkripcijos faktorius, kurie jungiasi su AP-1 vietomis (konsensuso seka: TGAC / GTCA) tam tikrų genų promotoriai reguliuoja jų transkripciją.
Šie Fos šeimos baltymai greitai ir laikinai sukelia specifinius smegenų regionus po ūminio daugelio piktnaudžiavimo narkotikų vartojimo (1 pav.) (8 – 11). Žinomi regionai yra branduolys accumbens ir nugaros striatumas, kurie yra svarbūs elgesio atsako į vaistus mediatoriai, ypač jų naudingasis ir lokomotorinio aktyvavimo poveikis (12, 13). Šie baltymai per keletą valandų po vaisto skyrimo grįžta į bazinį lygį.
1 pav
Schema, rodanti laipsnišką ΔFosB kaupimąsi, palyginti su greita ir trumpalaike kitų Fos šeimos baltymų indukcija reaguojant į piktnaudžiavimo narkotikais priemones. (A) Autoradiograma iliustruoja skirtingą šių įvairių baltymų indukciją ūminės stimuliacijos metu (1–2 val. po vienkartinio vaisto poveikio) ir lėtinės stimuliacijos metu (1 diena po pakartotinio vaisto poveikio). (B) Ūminis piktnaudžiavimo narkotikais poveikis branduolyje accumbens ir nugarinio dryžuotojo kūno neuronuose sukelia kelias Fos tipo baltymų bangas [susidedančias iš c-Fos (52–58 kDa izoformų), FosB (46–50 kDa izoformų), ΔFosB (33 kDa izoforma) ir Fra1 arba Fra2 (40 kDa)]. Taip pat sukeliamos biochemiškai modifikuotos ΔFosB izoformos (35–37 kDa); jos taip pat sukeliamos (nors ir mažais kiekiais) po ūminio vaisto vartojimo, tačiau dėl savo stabilumo išlieka smegenyse ilgą laiką. (C) Pakartotinai (pvz., du kartus per dieną) skiriant vaistą, kiekvienas ūminis dirgiklis sukelia žemą stabilių ΔFosB izoformų lygį, ką rodo apatinis persidengiančių linijų rinkinys, rodantis, kad kiekvienas ūminis dirgiklis sukelia ΔFosB. Dėl to bendras ΔFosB lygis palaipsniui didėja, kai dirgikliai kartojasi ilgalaikio gydymo metu, ką rodo didėjanti laiptuota linija grafike.
Po lėtinio piktnaudžiavimo narkotikais stebimos labai skirtingos reakcijos (1 pav.) . Biochemiškai modifikuotos ΔFosB izoformos (molekulinė masė 35–37 kDa) kaupiasi tose pačiose smegenų srityse po pakartotinio vaisto poveikio, tuo tarpu visi kiti Fos šeimos nariai pasižymi tolerancija (t. y. sumažėjusia indukcija, palyginti su pradine vaisto ekspozicija). Toks ΔFosB kaupimasis pastebėtas kokainui, morfinui, amfetaminui, alkoholiui, nikotinui ir fenciklidinui E (11, 14–18). Yra tam tikrų įrodymų, kad ši indukcija yra selektyvi vidutinio dydžio dygliuotų neuronų, esančių šiuose smegenų regionuose, pogrupiui, kuriame yra dinorfino/medžiagos P (15, 17), nors norint tai užtikrintai įrodyti, reikia atlikti daugiau tyrimų. 35–37 kDa ΔFosB izoformos daugiausia dimerizuojasi su JunD ir sudaro aktyvų ir ilgai išliekantį AP-1 kompleksą šiuose smegenų regionuose (19, 20). Šios ΔFosB izoformos kaupiasi dėl nepaprastai ilgo pusinės eliminacijos periodo (21) dėl lėtinio vaisto poveikio ir todėl išlieka neuronuose mažiausiai kelias savaites po vaisto vartojimo nutraukimo. Įdomu pastebėti, kad šios ΔFosB izoformos yra labai stabilūs tiesioginio ankstyvojo geno (fosB) produktai. ΔFosB izoformų stabilumas suteikia naują molekulinį mechanizmą, kuriuo vaistų sukelti genų raiškos pokyčiai gali išlikti nepaisant gana ilgo vaisto vartojimo nutraukimo laikotarpio.
Nors branduolys accumbens atlieka lemiamą vaidmenį piktnaudžiavimo narkotikų naudai, manoma, kad jis normaliai veikia reguliuodamas reakcijas į natūralius stiprintuvus, tokius kaip maistas, gėrimai, lytis ir socialinė sąveika (12, 13). Dėl to labai domimasi galimu šios smegenų srities vaidmeniu kituose kompulsiniuose elgesiuose (pvz., Patologiniame persivalgyme, lošimuose, pratybose ir pan.). Dėl šios priežasties ištyrėme, ar ΔFosB reguliuojamas kompulsinio veikimo gyvūnų modeliu. Iš tikrųjų, stabilios XF-B-35-kDa izoforminės izoforminės izoforminės yra sukeltos selektyviai per žiurkių branduolį, kuris turi kompulsinį veikimą.
Stabilių ΔFosB izoformų biocheminis tapatumas
Kaip minėta pirmiau, ΔFosB izoformos, kaupiančios po ilgai trunkančio piktnaudžiavimo vaisto ar priverstinio vaisto vartojimo, rodo 35 – 37 kDa molekulinę masę. Jie gali būti diferencijuojami nuo ΔFosB 33-kDa izoformo, kuris po vienos vaisto ekspozicijos (1) (14, 19, 22) sparčiai, bet trumpam sukeltas. Dabartiniai įrodymai rodo, kad 33-kDa izoforma yra natūrali baltymo forma, kuri yra pakeista, kad sudarytų stabilesnius 35-37-kDa produktus (19, 21). Tačiau biocheminių modifikacijų, konvertuojančių nestabilų 33-kDa izoformą į stabilias 35-37-kDa izoformas, pobūdis lieka neaiškus. Spėjama, kad gali būti atsakingas fosforilinimas (11). Pavyzdžiui, ΔFosB indukcija yra susilpnėjusi pelėms, kurioms trūksta DARPP-32, striatalu praturtinto baltymo (23, 24). Kadangi DARPP-32 reguliuoja baltymų fosfatazės-1 ir baltymų kinazės A (25, 26) katalizinį aktyvumą, reikalavimas, kad šis baltymas normaliai kauptų stabilius AFosB izoformus, rodo galimą fosforilinimo vaidmenį šių stabilių produktų gamyboje.
ΔFosB vaidmuo elgesio plastiškumo atžvilgiu nuo piktnaudžiavimo narkotikais
Įžvalgos apie ΔFosB vaidmenį priklausomybėje nuo narkotikų daugiausia gautos tiriant transgenines peles, kurioms ΔFosB gali būti selektyviai indukuojamas suaugusių gyvūnų branduolyje accumbens ir kituose striatumo regionuose (27, 28). Svarbu tai, kad šios pelės selektyviai per daug ΔFosB ekspresuoja dinorfiną/medžiagą P turinčiuose vidutinio dydžio dygliuotuose neuronuose, kur manoma, kad vaistai indukuoja baltymą. ΔFosB per daug raiškiančių pelių elgesio fenotipas, kuris daugeliu atžvilgių primena gyvūnus po lėtinio narkotikų poveikio, apibendrintas 1 lentelėje. Pelėms pasireiškė padidėjęs lokomotorinis atsakas į kokainą po ūmaus ir lėtinio vartojimo (28). Jos taip pat parodė padidėjusį jautrumą kokaino ir morfino naudingam poveikiui vietos sąlygojimo tyrimuose (11, 28) ir pačios skiria mažesnes kokaino dozes nei vados draugai, kurie neper daug raiškia ΔFosB.‡ Priešingai, šie gyvūnai pasižymi normaliu sąlyginiu lokomotoriniu jautrumu kokainui ir normaliu erdviniu mokymusi Morriso vandens labirinte (28). Šie duomenys rodo, kad ΔFosB padidina gyvūno jautrumą kokainui ir galbūt kitiems piktnaudžiavimo narkotikams ir gali būti santykinai ilgalaikio jautrinimo šiems narkotikams mechanizmas.
 striatum
| Padidėjęs lokomotorinis aktyvavimas reaguojant į ūminį ir kartotinį kokaino vartojimą. |
| Padidėjęs atlyginimų atsakas į kokainą ir morfiną vietos nustatymo tyrimuose. |
| Padidėjęs nedidelių kokaino savybių vartojimas. |
| Padidėjusi kokaino motyvacija progresuojančių santykių tyrimuose. |
| Padidėjęs anksiolitinis atsakas į alkoholį. |
| Padidėjęs kompulsinis veikimo elgesys. |
Remiantis 28 ir 29 nuorodose pateiktais duomenimis . †‡§¶
Elgesio plastiškumas, kurį tarpininkauja ΔFosB branduolio accumbens-dorsal striatum
Be to, yra preliminarių įrodymų, kad ΔFosB poveikis gali gerokai viršyti paties jautrumo vaistams reguliavimą ir apimti sudėtingesnį elgesį, susijusį su priklausomybės procesu. Pelės, ekspresuojančios ΔFosB, sunkiau stengiasi savarankiškai vartoti kokainą progresyvaus santykio savarankiško vartojimo tyrimuose, o tai rodo, kad ΔFosB gali padidinti gyvūnų jautrumą kokaino motyvacinėms savybėms ir tokiu būdu sukelti polinkį į atkrytį po vaisto vartojimo nutraukimo .‡ ΔFosB ekspresuojančios pelės taip pat pasižymi sustiprėjusiu alkoholio anksiolitiniu poveikiu § – fenotipu, kuris siejamas su padidėjusiu alkoholio vartojimu žmonėms. Šie ankstyvieji duomenys rodo, kad ΔFosB, be padidėjusio jautrumo piktnaudžiavimo narkotikams, sukelia kokybinius elgesio pokyčius, kurie skatina narkotikų paieškos elgesį. Taigi, ΔFosB gali veikti kaip ilgalaikis „molekulinis jungiklis“, padedantis inicijuoti ir palaikyti svarbiausius priklausomybės būsenos aspektus. Svarbus dabartinio tyrimo klausimas yra tai, ar ΔFosB kaupimasis narkotikų vartojimo metu skatina narkotikų paieškos elgesį po ilgų abstinencijos laikotarpių, net ir po to, kai ΔFosB lygis normalizuojasi (žr. toliau).
Suaugusios pelės, kurios selektyviai pernelyg ekspresuoja ΔFosB branduolyje accumbens ir nugariniame dryžuotajame kūne, taip pat pasižymi didesniu kompulsyviniu bėgimu, palyginti su kontrolinėmis vadomis.† Šie stebėjimai kelia įdomią galimybę, kad ΔFosB kaupimasis šiuose neuronuose atlieka bendresnį vaidmenį formuojant ir palaikant įpročių prisiminimus ir kompulsyvų elgesį, galbūt sustiprindamas neuroninių grandinių, kuriose veikia šie neuronai, veiksmingumą.
ΔFosB kaupiasi tam tikrose smegenų srityse už branduolio accumbens ir nugarinio dryžuotojo kūno ribų po lėtinio kokaino poveikio. Tarp šių sričių žymiausi yra migdolinis kūnas ir medialinė prefrontalinė žievė (15). Pagrindinis dabartinių tyrimų tikslas – suprasti ΔFosB indukcijos šiuose regionuose indėlį į priklausomybės fenotipą.
Ankstesnis darbas su fosB nokautinėmis pelėmis atskleidė, kad šie gyvūnai nesugeba jautrinti kokaino lokomotorinio poveikio, o tai atitinka aukščiau minėtų ΔFosB per daug ekspresuojančių pelių išvadas (22). Tačiau fosB mutantai parodė padidėjusį jautrumą ūminiam kokaino poveikiui, o tai neatitinka šių kitų išvadų. Išvadų aiškinimą su fosB mutantais vis dėlto apsunkina tai, kad šiems gyvūnams trūksta ne tik ΔFosB, bet ir viso ilgio FosB. Be to, mutantams trūksta baltymų visose smegenyse ir nuo pat ankstyviausių vystymosi stadijų. Iš tiesų, naujausi darbai patvirtina per daug ekspresuojančių ΔFosB pelių išvadas: sukelto c-Jun mutanto, kuris veikia kaip dominuojantis neigiamas ΔFosB antagonistas, indukcinė per didelė ekspresija selektyviai branduolio branduolyje, o nugaros striatumas rodo sumažėjusį jautrumą naudingam kokaino poveikiui . Šios išvados pabrėžia atsargumą, kurį reikia naudoti aiškinant pelių, turinčių konstitucines mutacijas, rezultatus ir iliustruoja pelių, turinčių indukuojamų ir ląstelių tipui specifinių mutacijų, svarbą tiriant suaugusiųjų smegenų plastiškumą.
ΔFosB tiksliniai genai
Kadangi ΔFosB yra transkripcijos faktorius, manoma, kad šis baltymas sukelia elgesio plastiškumą, pakeisdamas kitų genų raišką. ΔFosB susidaro alternatyviai sujungiant fosB geną ir jam trūksta C-galo transaktyvacijos domeno dalies, esančios pilno ilgio FosB. Todėl iš pradžių buvo pasiūlyta, kad ΔFosB veikia kaip transkripcijos represorius (29). Tačiau tyrimai ląstelių kultūroje aiškiai parodė, kad ΔFosB gali sukelti arba slopinti AP-1 tarpininkaujamą transkripciją, priklausomai nuo naudojamos konkrečios AP-1 vietos (21, 29–31). Viso ilgio FosB tam tikriems promotoriaus fragmentams daro tokį patį poveikį kaip ΔFosB, tačiau kitiems – skirtingą. Reikia atlikti daugiau tyrimų, kad būtų galima suprasti mechanizmus, kuriais grindžiamas šis įvairus ΔFosB ir FosB poveikis.
Mūsų grupė naudojo du metodus, kad nustatytų tikslinius ΔFosB genus. Vienas iš jų yra genų kandidatų metodas. Iš pradžių mes laikėme tariamais taikiniais α-amino-3-hidroksi-5-metil-4-izoksazolpropiono rūgšties (AMPA) glutamato receptorius, atsižvelgiant į svarbų glutamaterginio perdavimo vaidmenį branduolyje accumbens. Iki šiol atliktas darbas parodė, kad vienas konkretus AMPA glutamato receptorių subvienetas GluR2 gali būti sąžiningas ΔFosB taikinys (2 pav.). GluR2 ekspresija, bet ne kitų AMPA receptorių subvienetų išraiška, padidėja branduolyje accumbens (bet ne nugaros striatume), perekspresavus ΔFosB (28), o dominuojančio neigiamo mutanto ekspresija susilpnina kokaino gebėjimą sukelti baltymą.¶ Be to, GluR2 geno promotoriuje yra konsensuso AP-1 vieta, kuri suriša ΔFosB (28). Per didelis GluR2 ekspresija branduolyje accumbens, naudojant viruso sukeltą genų perkėlimą, padidina gyvūno jautrumą naudingam kokaino poveikiui, tokiu būdu imituodama dalį fenotipo, matomo ΔFosB ekspresuojančiose pelėse (28). GluR2 indukcija galėtų lemti sumažėjusį branduolio accumbens neuronų elektrofiziologinį jautrumą AMPA receptorių agonistams po lėtinio kokaino vartojimo (32), nes AMPA receptoriai, turintys GluR2, rodo bendrą laidumą ir sumažina Ca2 + pralaidumą. Sumažėjęs šių neuronų reagavimas į sužadinimo procesus gali sustiprinti atsaką į piktnaudžiavimo vaistą. Tačiau lieka nežinomi būdai, kaip dopaminerginiai ir glutamaterginiai signalai branduolyje accumbens reguliuoja priklausomybę; tam reikės suprasti neuroninės grandinės lygį, kurio dar nėra.
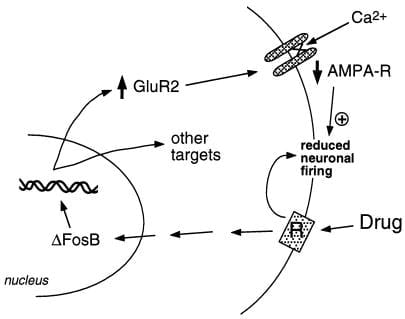
2 pav
AMPA glutamato receptoriaus subvienetas GluR2 yra tariamas ΔFosB taikinys. Parodyta, kaip ΔFosB sukelta GluR2 indukcija gali pakeisti branduolio accumbens neuronų fiziologinį jautrumą ir sukelti jautrumo reakcijas į piktnaudžiavimo vaistais atveju. Pagal šią schemą, piktnaudžiavimo vaistai sukelia savo ūminį sustiprinantį poveikį slopindami branduolio accumbens neuronus. Pakartotinai veikiant, vaistai indukuoja ΔFosB, kuris reguliuoja daugybę taikinių genų, įskaitant GluR2. Tai padidina AMPA receptorių (AMPA-R) dalį branduolio accumbens neuronuose, kuriuose yra GluR2 subvienetas, o tai sumažina bendrą AMPA srovę ir Ca2+ srovę. Dėl sumažėjusio jaudrumo neuronai gali tapti jautresni ūminiam vaistų slopinamajam poveikiui ir tokiu būdu vaistų sustiprinančiam poveikiui.
Kitas galimas ΔFosB taikinys yra dinorfiną koduojantis genas . Kaip minėta anksčiau, dinorfinas yra ekspresuojamas branduolio accumbens vidutinio dydžio dygliuotųjų neuronų pogrupyje, kurie indukuoja ΔFosB . Atrodo, kad dinorfinas veikia tarpląstelinėje grįžtamojo ryšio kilpoje: jo išsiskyrimas slopina dopaminerginius neuronus, kurie inervuoja vidutinio dydžio dygliuotus neuronus, per κ opioidų receptorius, esančius dopaminerginių nervų galūnėse branduolyje accumbens, taip pat ląstelių kūnuose ir dendrituose ventralinėje tegmentalinėje srityje (3 pav.) (33–35). Ši idėja atitinka κ receptorių agonisto gebėjimą, suleidus į bet kurį iš šių dviejų smegenų regionų, sumažinti vaisto atlygį (35).
Naujausi tyrimai parodė, kad ΔFosB sumažina dinorfino ekspresiją, o tai gali prisidėti prie atlygio mechanizmų, stebimų su ΔFosB indukcija, sustiprėjimo. Įdomu tai, kad kitas vaisto reguliuojamas transkripcijos faktorius CREB (cAMP atsako elemento surišantis baltymas) (2, 3) sukelia priešingą poveikį: jis indukuoja dinorfino ekspresiją branduolyje accumbens ir sumažina kokaino ir morfino teikiamas naudingas savybes (4).**
Kadangi vaisto sukelta CREB aktyvacija greitai išsisklaido po vaisto vartojimo, toks abipusis dinorfino reguliavimas CREB ir ΔFosB galėtų paaiškinti abipusius elgesio pokyčius, kurie atsiranda ankstyvosios ir vėlyvosios abstinencijos fazėse, kai ankstyvosiose abstinencijos fazėse vyrauja neigiami emociniai simptomai ir sumažėjęs jautrumas vaistui, o vėlesniais laiko momentais vyrauja jautrumas naudingam ir skatinamajam vaistų motyvaciniam poveikiui.
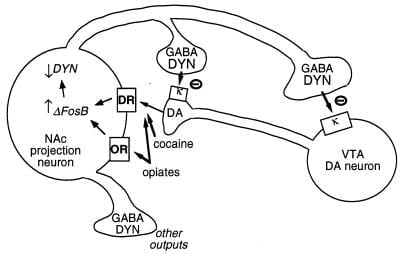
3 pav
Dinorfinas yra tariamas ΔFosB taikinys. Pavaizduotas ventralinės tegmentinės srities (VTA) dopamino (DA) neuronas, inervuojantis branduolio accumbens (NAc) GABAerginio projekcinio neurono klasę, kuri ekspresuoja dinorfiną (DYN). Dinorfinas šioje grandinėje atlieka grįžtamojo ryšio mechanizmą: dinorfinas, išsiskiriantis iš NAc neuronų galūnių, veikia κ opioidų receptorius, esančius DA neuronų nervų galūnėse ir ląstelių kūnuose, slopindamas jų funkcionavimą. ΔFosB , slopindamas dinorfino ekspresiją, gali sumažinti šią grįžtamojo ryšio kilpą ir sustiprinti narkotinių medžiagų teikiamas naudingas savybes. Neparodytas abipusis CREB poveikis šiai sistemai: CREB sustiprina dinorfino ekspresiją ir taip susilpnina narkotinių medžiagų teikiamas naudingas savybes (4). GABA, γ-aminosviesto rūgštis; DR, dopamino receptorius; OR, opioidų receptorius.
Antrasis būdas, naudojamas identifikuoti tikslinius ΔFosB genus, apima DNR mikrodalelių analizę. Indukuojama per didelė ΔFosB ekspresija padidina arba sumažina daugybės genų ekspresiją accumbens branduolyje (36). Nors dabar reikia daug nuveikti, kad kiekvienas iš šių genų būtų patvirtintas kaip fiziologinis ΔFosB taikinys ir suprastų jų indėlį į priklausomybės fenotipą, atrodo, kad vienas svarbus taikinys yra Cdk5 (nuo ciklino priklausoma kinazė-5). Taigi, iš pradžių Cdk5 buvo identifikuotas kaip ΔFosB reguliuojamas naudojant mikrodaleles, o vėliau buvo įrodyta, kad po lėtinio kokaino vartojimo buvo sukeltas branduolio accumbens ir nugaros striatume (37). ΔFosB aktyvuoja cdk5 geną per AP-1 vietą, esančią geno promotoriuje (36). Šie duomenys kartu patvirtina schemą, kurioje kokainas sukelia ΔFosB Cdk5 ekspresiją šiuose smegenų regionuose. Panašu, kad Cdk5 indukcija bent iš dalies keičia dopaminerginį signalą per padidėjusį DARPP-32 fosforilinimą (37), kuris paverčiamas baltymų fosfatazės-1 inhibitoriumi į baltymų kinazės A inhibitoriumi, kai fosforilinamas Cdk5 (26).
ΔFosB vaidmuo tarpininkuojant „nuolatinį“ plastiškumą su narkotikais
Nors ΔFosB signalas yra gana ilgalaikis, jis nėra nuolatinis. ΔFosB palaipsniui silpsta ir po 1–2 mėnesių nuo narkotikų vartojimo nutraukimo smegenyse nebeaptinkamas, net jei tam tikri elgesio sutrikimai išlieka daug ilgesnį laiką. Todėl, regis, ΔFosB pats savaime negali tarpininkauti šiems pusiau nuolatiniams elgesio sutrikimams. Sunkumai ieškant molekulinių adaptacijų, kurios yra itin stabilių su priklausomybe susijusių elgesio pokyčių pagrindas, yra analogiški iššūkiams, su kuriais susiduriama mokymosi ir atminties srityje. Nors yra elegantiškų ląstelinių ir molekulinių mokymosi ir atminties modelių, iki šiol nepavyko nustatyti molekulinių ir ląstelinių adaptacijų, kurios būtų pakankamai ilgalaikės, kad paaiškintų labai stabilius elgesio prisiminimus. Iš tiesų, ΔFosB yra ilgiausiai žinoma adaptacija suaugusiųjų smegenyse, ne tik reaguojant į piktnaudžiavimo narkotikais atvejus, bet ir į bet kokį kitą trikdį (kuris nesusijęs su pažeidimais). Buvo pateikti du pasiūlymai, tiek priklausomybės, tiek mokymosi ir atminties srityse, siekiant paaiškinti šį neatitikimą.
Viena iš galimybių yra ta, kad trumpalaikiai genų raiškos pokyčiai, pavyzdžiui, tarpininkaujantys ΔFosB ar kitiems transkripcijos faktoriams (pvz., CREB), gali sukelti ilgalaikius neuronų morfologijos ir sinapsės struktūros pokyčius. Pavyzdžiui, dendritinių spyglių tankio padidėjimas (ypač dvigalvių spyglių padidėjimas) lydi padidėjusį glutamaterginių sinapsių veiksmingumą hipokampo piramidiniuose neuronuose ilgalaikės potenciacijos metu (38–40) ir yra lygiagretus padidėjusiam elgesio jautrumui kokainui, kurį lemia vidutinio dydžio dygliuotųjų neuronų branduolyje accumbens (41). Nežinoma, ar tokie struktūriniai pokyčiai yra pakankamai ilgalaikiai, kad būtų galima paaiškinti labai stabilius elgesio pokyčius, nors pastarieji išlieka mažiausiai 1 mėnesį po vaisto vartojimo nutraukimo. Naujausi duomenys leidžia manyti, kad ΔFosB ir jo sukelta Cdk5 indukcija yra vienas iš vaisto sukeltų sinapsės struktūros pokyčių branduolyje accumbens tarpininkų (4 pav.).‡‡ Taigi, Cdk5 inhibitoriaus infuzija į branduolį accumbens neleidžia pakartotiniam kokaino poveikiui padidinti dendritinių spyglių tankio šioje srityje. Tai atitinka požiūrį, kad Cdk5, kuriuo gausu smegenyse, reguliuoja neuronų struktūrą ir augimą (žr. 36 ir 37 nuorodas). Gali būti, nors tai jokiu būdu neįrodyta, kad tokie neuronų morfologijos pokyčiai gali išlikti ilgiau nei pats ΔFosB signalas.
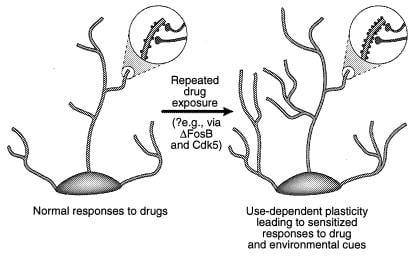
4 pav
Dendritinės struktūros reguliavimas piktnaudžiavimu. Parodyta neurono dendrito medžio plėtra po ilgalaikio piktnaudžiavimo narkotikais poveikio, kaip buvo pastebėta vartojant kokainą accumbens branduolyje ir prefrontalinėje žievėje (41). Padidinimo sritys rodo dendritinių stuburų padidėjimą, kuris, kaip manoma, atsiranda kartu su aktyvuotais nervų galais. Šį dendritinio stuburo tankio padidėjimą gali sąlygoti ΔFosB ir atitinkama Cdk5 indukcija (žr. Tekstą). Tokie dendritinės struktūros pokyčiai, kurie yra panašūs į pastebėtus kai kuriuose mokymosi modeliuose (pvz., Ilgalaikis potencijavimas), galėtų būti ilgalaikis jautrinamas atsakas į piktnaudžiavimo narkotikus ar aplinkos užuominas. [Padauginta gavus leidimą iš ref. 3 (Autorių teisės, 2001, „Macmillian Magazines Ltd.“)].
Kita galimybė yra ta, kad trumpalaikė transkripcijos faktoriaus (pvz., ΔFosB, CREB) indukcija sukelia nuolatinius genų raiškos pokyčius, modifikuodama chromatiną . Manoma, kad šie ir daugelis kitų transkripcijos faktorių aktyvuoja arba slopina tikslinio geno transkripciją, atitinkamai skatindami histonų acetilinimą arba deacetilinimą šalia geno (42). Nors toks histonų acetilinimas ir deacetilinimas, matyt, gali vykti labai greitai, įmanoma, kad ΔFosB arba CREB gali sukelti ilgalaikes adaptacijas fermentiniame mechanizme, kuris kontroliuoja histonų acetilinimą. ΔFosB arba CREB taip pat gali skatinti ilgalaikius genų raiškos pokyčius, reguliuodami kitas chromatino modifikacijas (pvz., DNR arba histonų metilinimą), kurios buvo susijusios su nuolatiniais genų transkripcijos pokyčiais, atsirandančiais vystymosi metu (žr. 42 ir 43 nuorodas). Nors šios galimybės lieka spekuliatyvios, jos galėtų pateikti mechanizmą, kuriuo trumpalaikė adaptacija prie piktnaudžiavimo narkotikais (ar kokio nors kito sutrikimo) sukelia iš esmės visą gyvenimą trunkančias elgesio pasekmes.
Nuorodos
- ↵
- Nestler EJ,
- „Hope BT“,
- Widnell KL
(1993) Neuronas 11: 995 – 1006.
„CrossRef Medline“ mokslo tinklas
- ↵
- Berke JD,
- Hyman SE
(2000) Neuronas 25: 515 – 532.
„CrossRef Medline“ mokslo tinklas
- ↵
- Nestler EJ
(2001) „Nat Rev“ Neurosci 2: 119 – 128.
„CrossRef Medline“ mokslo tinklas
- ↵
- Carlezon WA Jr,
- Thome J,
- Olson VG,
- Lane-Ladd SB,
- Brodkin ES,
- Hiroi N,
- Duman RS,
- Neve RL,
- Nestler EJ
(1998) Mokslas 282: 2272 – 2275.
Anotacija / NEMOKAMAS Visas tekstas
-
- O'Donovan KJ,
- Tourtellotte WG,
- Millbrandt J,
- Baraban JM
(1999) tendencijos Neurosci 22: 167 – 173.
„CrossRef Medline“ mokslo tinklas
- ↵
- Mackler SA
- Korutla L,
- Cha XY,
- Koebbe MJ,
- Fournier KM,
- Bowers MS,
- Kalivas PW
(2000) J Neurosci 20: 6210 – 6217.
Anotacija / NEMOKAMAS Visas tekstas
- ↵
- Morgan JI,
- Curran T
(1995) tendencijos Neurosci 18: 66 – 67.
„CrossRef Medline“ mokslo tinklas
- ↵
- Young ST,
- Porrino LJ,
- Iadarola MJ
(1991) Proc Natl Acad Sci JAV 88: 1291 – 1295.
Anotacija / NEMOKAMAS Visas tekstas
-
- Graybiel AM
- Moratalla R
- Robertson HA
(1990) Proc Natl Acad Sci JAV 87: 6912 – 6916.
Anotacija / NEMOKAMAS Visas tekstas
-
- Vilties B,
- Kosofsky B,
- Hyman SE,
- Nestler EJ
(1992) Proc Natl Acad Sci JAV 89: 5764 – 5768.
Anotacija / NEMOKAMAS Visas tekstas
- ↵
- Kelz MB,
- Nestler EJ
(2000) Curr Opinion Neurol 13: 715 – 720.
„CrossRef Medline“ mokslo tinklas
- ↵
- Koob GF,
- Sanna PP,
- Bloom FE
(1998) Neuronas 21: 467 – 476.
„CrossRef Medline“ mokslo tinklas
- ↵
- Išminčius RA
(1998) priklausomybė nuo narkotikų 51: 13 – 22.
„CrossRef Medline“ mokslo tinklas
- ↵
- „Hope BT“,
- Nye HE
- Kelz MB,
- Savarankiškas DW
- Iadarola MJ,
- Nakabeppu Y
- Duman RS,
- Nestler EJ
(1994) Neuronas 13: 1235 – 1244.
„CrossRef Medline“ mokslo tinklas
- ↵
- Nye H,
- „Hope BT“,
- Kelz M,
- Iadarola M,
- Nestler EJ
(1995) J Pharmacol Exp Ther 275: 1671 – 1680.
Anotacija / NEMOKAMAS Visas tekstas
-
- Nye HE
- Nestler EJ
(1996) Mol Pharmacol 49: 636 – 645.
- ↵
- Moratalla R
- Elibol B,
- Vallejo M,
- Graybiel AM
(1996) Neuronas 17: 147 – 156.
„CrossRef Medline“ mokslo tinklas
- ↵
- Pich EM,
- Pagliusi SR,
- Tessari M,
- Talabot-Ayer D,
- Hooft van Huijsduijnen R
- Chiamulera C
(1997) Mokslas 275: 83 – 86.
Anotacija / NEMOKAMAS Visas tekstas
- ↵
- Chen JS,
- Nye HE
- Kelz MB,
- Hiroi N,
- Nakabeppu Y
- „Hope BT“,
- Nestler EJ
(1995) Mol Pharmacol 48: 880 – 889.
- ↵
- Hiroi N,
- Brown J,
- Jūs H,
- Saudou F
- Vaidya VA
- Duman RS,
- Greenberg ME
- Nestler EJ
(1998) J Neurosci 18: 6952 – 6962.
Anotacija / NEMOKAMAS Visas tekstas
- ↵
- Chen J,
- Kelz MB,
- „Hope BT“,
- Nakabeppu Y
- Nestler EJ
(1997) J Neurosci 17: 4933 – 4941.
Anotacija / NEMOKAMAS Visas tekstas
- ↵
- Hiroi N,
- Brown J,
- Haile C,
- Jūs H,
- Greenberg ME
- Nestler EJ
(1997) Proc Natl Acad Sci JAV 94: 10397 – 10402.
Anotacija / NEMOKAMAS Visas tekstas
- ↵
- Fienberg AA,
- Hiroi N,
- Mermelstein P,
- Song WJ,
- Snyder GL
- Nishi A,
- Cheramy A,
- O'Callaghan JP,
- Miller D,
- Cole GD,
- et al.
(1998) Mokslas 281: 838 – 842.
Anotacija / NEMOKAMAS Visas tekstas
- ↵
- Hiroi N,
- Feinberg A,
- Haile C,
- Greengard P,
- Nestler EJ
(1999) Eur J Neurosci 11: 1114 – 1118.
„CrossRef Medline“ mokslo tinklas
- ↵
- Greengard P,
- Allen PB,
- Nairn AC
(1999) Neuronas 23: 435 – 447.
„CrossRef Medline“ mokslo tinklas
- ↵
- Bibb JA,
- Snyder GL
- Nishi A,
- Yan Z,
- Meijer L,
- Fienberg AA,
- Tsai LH,
- Kwon YT,
- Girault JA,
- Czernik AJ,
- et al.
(1999) Gamta (Londonas) 402: 669 – 671.
- ↵
- Chen JS,
- Kelz MB,
- Zeng GQ,
- Sakai N,
- Steffen C,
- Shockett PE,
- Picciotto M,
- Duman RS,
- Nestler EJ
(1998) Mol Pharmacol 54: 495 – 503.
Anotacija / NEMOKAMAS Visas tekstas
- ↵
- Kelz MB,
- Chen JS,
- Carlezon WA
- Whisler K
- Gilden L
- Beckmann AM,
- Steffen C,
- Zhang YJ,
- Marotti L
- Savarankiškas SW,
- et al.
(1999) Gamta (Londonas) 401: 272 – 276.
- ↵
- Dobrazanski P,
- Noguchi T
- Kovary K,
- „Rizzo CA“
- Lazo PS
- Bravo R
(1991) Mol Cell Biol 11: 5470 – 5478.
Anotacija / NEMOKAMAS Visas tekstas
-
- Nakabeppu Y
- Nathans D
(1991) langelis 64: 751 – 759.
„CrossRef Medline“ mokslo tinklas
- ↵
- Jenas J,
- Išmintis RM
- Tratner I,
- Verma IM
(1991) Proc Natl Acad Sci JAV 88: 5077 – 5081.
Anotacija / NEMOKAMAS Visas tekstas
- ↵
- Baltas FJ,
- Hu XT,
- Zhang XF,
- Wolf ME
(1995) J Pharmacol Exp Ther 273: 445 – 454.
Anotacija / NEMOKAMAS Visas tekstas
- ↵
- Hyman SE
(1996) Neuronas 16: 901 – 904.
„CrossRef Medline“ mokslo tinklas
-
- Kreek MJ
(1997) Pharmacol Biochem Behav 57: 551 – 569.
„CrossRef Medline“ mokslo tinklas
- ↵
- Shippenberg TS,
- Rea W
(1997) Pharmacol Biochem Behav 57: 449 – 455.
„CrossRef Medline“ mokslo tinklas
- ↵
- Chen JS,
- Zhang YJ,
- Kelz MB,
- Steffen C,
- Ang ES,
- Zeng L,
- Nestler EJ
(2000) J Neurosci 20: 8965 – 8971.
Anotacija / NEMOKAMAS Visas tekstas
- ↵
- Bibb JA,
- Chen JS,
- Taylor JR,
- Svenningsson P,
- Nishi A,
- Snyder GL
- Yan Z,
- Sagawa ZK,
- Nairn AC,
- Nestler EJ,
- et al.
(2001) Gamta (Londonas) 410: 376 – 380.
- ↵
- Luscher C,
- Nicoll RA
- Malenka RC,
- Muller D
(2000) Nat Neurosci 3: 545 – 550.
„CrossRef Medline“ mokslo tinklas
-
- Malinow R
- Mainen ZF,
- Hayashi Y
2000 10: 352 – 357.
„CrossRef Medline“ mokslo tinklas
- ↵
- Scannevin RH,
- Huganir RL
(2000) „Nat Rev“ Neurosci 1: 133 – 141.
„CrossRef Medline“ mokslo tinklas
Robinson, TE & Kolb, B. (1999) (1997) Eur. J. Neurosci. 11, 1598–1604.
- ↵
- Carey M,
- Smale ST
(2000) Transkripcijos reguliavimas Eukariotuose (Cold Spring Harbor Lab. Spauda, Plainview, NY).
- ↵
- Spencer VA
- Davie JR
(1999) Genas 240: 1 – 12.
„CrossRef Medline“ mokslo tinklas
 Facebook
 Twitter
- "Google+"
 CiteULike
 Gardžios
 Digg
 Mendeley
„HighWire“ spaudos prieglobos straipsniai nurodo šį straipsnį
- Gamtos ir narkotikų apdovanojimų įstatymas dėl bendrų neuroninių plastiškumo mechanizmų su {Delta} FosB kaip pagrindiniu tarpininku J. Neurosci. 2013 33 (8) 3434-3442
- Narkotikai, nusikalstamumas ir hedoninės alostazės epigenetika Šiuolaikinio baudžiamojo teisingumo leidinys 2012 28 (3) 314-328
- Abstraktus
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Abstraktus
- Visas tekstas (HTML)
- Visas tekstas (PDF)
- Morfinas aktyvuoja E dvidešimt šešių panašių transkripcijos faktorių-1 / serumo reakcijos faktorių kelią per ekstraląstelinius signalus reguliuojamus kinazės 1 / 2 F11 ląstelėse, gautose iš nugaros šaknų ganglijų neuronų J. Pharmacol. Gal. Ther. 2012 342 (1) 41-52
- Gateway narkotikų molekulinis mechanizmas: Nikotino premjero genų ekspresijos inicijuoti epigenetiniai pokyčiai. Sci Transl Med 2011 3 (107) 107ra109
- Glaudesnis sacharozės ir kokaino savęs administravimas ir Cue sukeltas vaistas, ieškantis po VGLUT2 praradimo vidutinio smegenų dopamino neuronuose pelėse J. Neurosci. 2011 31 (35) 12593-12603
- Lėtinis pertrūkis hipoksija padidina kraujo spaudimą ir FosB / {Delta} FosB ekspresiją centriniuose autonominiuose regionuose Esu. J. Physiol. Regul. Integr. Comp. Physiol. 2011 301 (1) R131-R139
- GPR37 / PAEL receptoriaus nebuvimas slopina striatalų Akt ir ERK2 fosforilinimą, {Delta} FosB ekspresiją, ir sąlygotą vietą pirmenybę teikiant amfetaminui ir kokainui FASEB J. 2011 25 (6) 2071-2081
- Ryškumas tarp pradinės alkoholio poveikio trukmės ir molekulinės tolerancijos išlikimo yra labai netiesinis J. Neurosci. 2011 31 (7) 2436-2446
- In vivo in vivo bioluminescencijos tyrimas atskleidžia Redox reguliuojamą aktyvatoriaus baltymą-1 aktyvaciją pelių, kurių kraujagyslių hipertenzija yra Renovaskulinė, paraventrikuliniame gleivyje Hipertenzija 2011 57 (2) 289-297
- Striatinis pernelyg didelis {Delta} FosB ekspresija atkartoja lėtinį levodopos sukeltą netyčinį judėjimą J. Neurosci. 2010 30 (21) 7335-7343
- Pagrindinių psichikos sutrikimų poveikio aplinkai epigenetinis tarpininkavimas Schizophr Bull 2009 35 (6) 1045-1056
- DNR pagrindu veikiantys MRT zondai, skirti specifiniam chroniško poveikio amfetaminui aptikti gyvose smegenyse J. Neurosci. 2009 29 (34) 10663-10670
- Pakeistas dendritinių stuburo plastiškumas, nutraukiant kokainą J. Neurosci. 2009 29 (9) 2876-2884
- „Drosophila“ pernelyg didelio ryškumo ekranas Nustato GSK-3 {beta} / gaurelių neuronų vaidmenis kaip AP-1 priklausomo vystymosi plastiškumo reguliatorių Genetika 2008 180 (4) 2057-2071
- Transkripcijos MRT: naujas „Living Brain“ vaizdas Neurologas 2008 14 (5) 503-520
- {Delta} FosB indukcija Orbitofrontalinės Cortex mediatoriuose toleruoja kokaino sukeliamą pažinimo sutrikimą J. Neurosci. 2007 27 (39) 10497-10507
- Nuolatinis pažeidžiamumas dėl metamfetamino ieškojimo elgsenos atkūrimo glijų ląstelių linijos išvestinių neurotrofinių faktorių mutantų pelėms FASEB J. 2007 21 (9) 1994-2004
- {Delta} „FosB“ „Nucleus Accumbens“ reglamentuoja sustiprintą instrumentinį elgesį ir motyvaciją J. Neurosci. 2006 26 (36) 9196-9204
- {Delta} FosB stabilumo reguliavimas fosforilinimo būdu. J. Neurosci. 2006 26 (19) 5131-5142
- Mutantų NMDA receptorių ekspresija dopamino D1 receptorių turinčiose ląstelėse neleidžia jautrinti kokainui ir mažina kokaino pasirinkimą J. Neurosci. 2005 25 (28) 6651-6657
- D1 dopamino receptoriai moduliuoja {Delta} FosB indukciją žiurkių striatume po intermituojančio morfino vartojimo J. Pharmacol. Gal. Ther. 2005 314 (1) 148-154
- Aukšto savanoriško rato važiavimo veiklai pasirinktų pelių neurobiologija Integr. Comp. Biol. 2005 45 (3) 438-455
- Vandens trūkumo ir rehidratacijos įtaka c-Fos ir FosB dažymui žiurkės supraopticiniame branduolyje ir lamina terminalis regione Esu. J. Physiol. Regul. Integr. Comp. Physiol. 2005 288 (1) R311-R321
- FosB / {Delta} FosB genų transkripcinė indukcija mechaniniu stresu Osteoblastuose J Biol Chem 2004 279 (48) 49795-49803
- {Delta} FosB indukcija su smegenų konstrukcijomis po lėtinio streso J. Neurosci. 2004 24 (47) 10594-10602
- Sim1 geno dozavimas moduliuoja homeostatinį maitinimo atsaką į padidėjusius mitybos riebalus pelėse Esu. J. Physiol. Endokrinolis. Metab. 2004 287 (1) E105-E113
- Žmogaus regos nervo galvos astrocitų genų ekspresijos DNR mikroarray analizė atsakant į hidrostatinį slėgį Physiol. Genomika 2004 17 (2) 157-169
- Superoksidas dalyvauja centrinėje nervų sistemos aktyvizacijoje ir širdies nepakankamumo širdies nepakankamumo simptomuose Circ. Res. 2004 94 (3) 402-409
- Adenozino A2A receptoriai neuroadaptacijoje prie pakartotinės dopaminerginės stimuliacijos: Parkinsono ligos diskinezijų gydymo pasekmės Neurologija 2003 61 (90116) S74-81
- Su citoplazmomis susietų su Fos susijusių baltymų lokalizacija varle, Rana esculenta, Testis: Gonadotropino atpalaiduojančio hormono agonisto in vivo ir tiesioginis in vitro poveikis Biol. Reprod. 2003 68 (3) 954-960
- Periadolescent pelės parodyti sustiprintą Delta FosB Upregulation reaguojant į kokaino ir amfetamino J. Neurosci. 2002 22 (21) 9155-9159
- Delta FosB reguliuoja ratų važiavimą J. Neurosci. 2002 22 (18) 8133-8138
- CREB aktyvumas branduolio accumbens apvalkale kontroliuoja elgesio reakcijų į emocinius stimulus gavimą Proc. Natl. Acad. Sci. JAV 2002 99 (17) 11435-11440
- Psichogenomika: priklausomybės supratimo galimybės J. Neurosci. 2001 21 (21) 8324-8327