OPMERKINGEN: Zoals uit latere onderzoeken zal blijken, is DeltaFosB de gebruikelijke moleculaire schakelaar voor zowel drugs- als gedragsverslavingen. Het is een transcriptiefactor, wat betekent dat het beïnvloedt welke genen worden in- of uitgeschakeld. Zoals elders vermeld, kapen verslavende drugs alleen de normale mechanismen. Daarom is het dwaas om te suggereren dat gedragsverslavingen niet kunnen bestaan.
Proc Natl Acad Sci VS A. 2001 september 25; 98(20): 11042-11046.
doi: 10.1073 / pnas.191352698.
Eric J. Nestler*, Michel Barrot en David W. Self
Afdeling Psychiatrie en Centrum voor Basic Neuroscience, University of Texas Southwestern Medical Center, 5323 Harry Hines Boulevard, Dallas, TX 75390-9070
Abstract
De lange duur van sommige gedragsafwijkingen die kenmerkend zijn voor drugsverslaving, suggereert dat de regulatie van neuronale genexpressie mogelijk betrokken is bij het proces waarmee drugs een verslavingstoestand veroorzaken. Steeds meer bewijs suggereert dat de transcriptiefactor ΔFosB een mechanisme vertegenwoordigt waarmee drugs relatief stabiele veranderingen in de hersenen teweegbrengen die bijdragen aan het verslavingsfenotype. ΔFosB , een lid van de Fos - familie van transcriptiefactoren, hoopt zich op in een subset van neuronen in de nucleus accumbens en het dorsale striatum (hersengebieden die belangrijk zijn voor verslaving) na herhaaldelijk gebruik van veel soorten drugs. Een vergelijkbare ophoping van ΔFosB treedt op na dwangmatig hardlopen, wat suggereert dat ΔFosB zich kan ophopen als reactie op veel soorten dwangmatig gedrag . Belangrijk is dat ΔFosB relatief lang in neuronen aanwezig blijft vanwege zijn buitengewone stabiliteit. Daarom vertegenwoordigt ΔFosB een moleculair mechanisme dat veranderingen in genexpressie kan initiëren en in stand houden, veranderingen die lang aanhouden nadat de blootstelling aan het middel is gestopt . Studies met induceerbare transgene muizen die ΔFosB of een dominante negatieve remmer van het eiwit overexpressen, leveren direct bewijs dat ΔFosB een verhoogde gevoeligheid voor de gedragseffecten van drugs veroorzaakt en mogelijk ook een verhoogd drugszoekend gedrag. Dit onderzoek ondersteunt de opvatting dat ΔFosB functioneert als een soort aanhoudende "moleculaire schakelaar" die acute reacties op drugs geleidelijk omzet in relatief stabiele aanpassingen die bijdragen aan de neurale en gedragsmatige plasticiteit op lange termijn die ten grondslag ligt aan verslaving.
Verslavingsonderzoek is gericht op het begrijpen van de complexe manieren waarop drugsmisbruik de hersenen veranderen en gedragsafwijkingen veroorzaken die kenmerkend zijn voor verslaving. Een van de cruciale uitdagingen op dit gebied is het identificeren van relatief stabiele, door geneesmiddelen veroorzaakte veranderingen in de hersenen om rekening te houden met gedragsafwijkingen die bijzonder langlevend zijn. Een menselijke verslaafde kan bijvoorbeeld een verhoogd risico lopen op terugval, zelfs na jaren van onthouding.
De stabiliteit van deze gedragsafwijkingen heeft geleid tot de suggestie dat ze, althans gedeeltelijk, gemedieerd kunnen worden door veranderingen in genexpressie (1-3). Volgens deze visie verstoort herhaalde blootstelling aan een verslavende drug herhaaldelijk de transmissie bij specifieke synapsen in de hersenen die gevoelig zijn voor de drug. Zulke verstoringen signaleren uiteindelijk via intracellulaire signaaltransductieroutes naar de celkern, waar ze eerst veranderingen in de expressie van specifieke genen initiëren en vervolgens in stand houden. Een primair mechanisme waarmee signaaltransductieroutes de genexpressie beïnvloeden, is de regulatie van transcriptiefactoren, eiwitten die binden aan regulerende gebieden van genen en hun transcriptie modificeren.
Eén doel van het verslavingsonderzoek was daarom het identificeren van transcriptiefactoren die veranderd zijn in hersengebieden die betrokken zijn bij verslaving na chronische toediening van drugs. Er zijn de afgelopen tien jaar verschillende van dergelijke transcriptiefactoren geïdentificeerd (1–6). De focus van deze review ligt op een specifieke transcriptiefactor genaamd ΔFosB.
Inductie van ΔFosB door drugsmisbruik
ΔFosB, gecodeerd door het fosB-gen, is een lid van de Fos-familie van transcriptiefactoren, waartoe ook c-Fos, FosB, Fra1 en Fra2 behoren (7). Deze Fos-familie-eiwitten heterodimeriseren met Jun-familie-eiwitten (c-Jun, JunB of JunD) om actieve AP-1-transcriptiefactoren (activatoreiwit-1) te vormen die binden aan AP-1-plaatsen (consensussequentie: TGAC/GTCA) die aanwezig zijn in de promoters van bepaalde genen om hun transcriptie te reguleren.
Deze eiwitten uit de Fos-familie worden snel en tijdelijk geïnduceerd in specifieke hersengebieden na acute toediening van veel misbruikende medicijnen (Fig. 1) (8-11). Prominente regio's zijn de nucleus accumbens en het dorsale striatum, die belangrijke bemiddelaars zijn van gedragsreacties op de medicijnen, in het bijzonder hun belonende en bewegingsactiverende effecten (12, 13). Deze eiwitten keren binnen enkele uren na toediening van het geneesmiddel terug naar hun basale niveaus.
Figuur 1
Schema dat de geleidelijke accumulatie van ΔFosB weergeeft, in tegenstelling tot de snelle en voorbijgaande inductie van andere Fos-familie-eiwitten als reactie op drugsgebruik. (A) Het autoradiogram illustreert de differentiële inductie van deze verschillende eiwitten door acute stimulatie (1-2 uur na eenmalige blootstelling aan een drug) versus chronische stimulatie (1 dag na herhaalde blootstelling aan een drug). (B) Verschillende golven van Fos-achtige eiwitten [bestaande uit c-Fos (52- tot 58-kDa-isovormen), FosB (46- tot 50-kDa-isovormen), ΔFosB (33-kDa-isovorm) en Fra1 of Fra2 (40 kDa)] worden geïnduceerd in neuronen van de nucleus accumbens en het dorsale striatum door acute toediening van een drug. Ook worden biochemisch gemodificeerde isovormen van ΔFosB (35-37 kDa) geïnduceerd; Ook zij worden geïnduceerd (zij het op een laag niveau) na acute toediening van het geneesmiddel, maar blijven vanwege hun stabiliteit langdurig in de hersenen aanwezig. (C) Bij herhaalde (bijvoorbeeld tweemaal daagse) toediening van het geneesmiddel induceert elke acute stimulus een laag niveau van de stabiele ΔFosB-isoformen, wat wordt aangegeven door de onderste set overlappende lijnen die de door elke acute stimulus geïnduceerde ΔFosB weergeven. Het resultaat is een geleidelijke toename van de totale niveaus van ΔFosB bij herhaalde stimuli gedurende een chronische behandeling, wat wordt aangegeven door de stijgende stapsgewijze lijn in de grafiek.
Na chronische toediening van drugs worden zeer verschillende reacties waargenomen (Fig. 1) . Biochemisch gemodificeerde isovormen van ΔFosB (molecuulmassa 35-37 kDa) hopen zich op in dezelfde hersengebieden na herhaalde blootstelling aan drugs, terwijl alle andere leden van de Fos-familie tolerantie vertonen (dat wil zeggen, een verminderde inductie vergeleken met de initiële blootstelling aan drugs). Dergelijke accumulatie van ΔFosB is waargenomen bij cocaïne, morfine, amfetamine, alcohol, nicotine en fencyclidine (11, 14-18). Er zijn aanwijzingen dat deze inductie selectief is voor de dynorfine/substantie P-bevattende subgroep van middelgrote spiny neuronen in deze hersengebieden (15, 17), hoewel meer onderzoek nodig is om dit met zekerheid vast te stellen. De 35- tot 37-kDa-isovormen van ΔFosB dimeriseren voornamelijk met JunD om een actief en langdurig AP-1-complex te vormen in deze hersengebieden (19, 20). Deze ΔFosB-isoformen hopen zich op bij chronische blootstelling aan het geneesmiddel vanwege hun buitengewoon lange halfwaardetijden (21) en blijven daarom minstens enkele weken na het stoppen van de toediening van het geneesmiddel in de neuronen aanwezig. Het is interessant om op te merken dat deze ΔFosB-isoformen zeer stabiele producten zijn van een onmiddellijk vroeg gen (fosB). De stabiliteit van de ΔFosB-isoformen biedt een nieuw moleculair mechanisme waardoor door geneesmiddelen geïnduceerde veranderingen in genexpressie kunnen aanhouden ondanks relatief lange perioden van onthouding van het geneesmiddel.
Hoewel de nucleus accumbens een cruciale rol speelt in de belonende effecten van drugsmisbruik, wordt aangenomen dat deze normaal functioneert door de reacties op natuurlijke bekrachtigers, zoals eten, drinken, seks en sociale interacties, te reguleren (12, 13). Als gevolg hiervan is er aanzienlijke belangstelling voor een mogelijke rol van dit hersengebied bij ander dwangmatig gedrag (bijvoorbeeld pathologisch overeten, gokken, lichaamsbeweging, enz.). Om deze reden hebben we onderzocht of ΔFosB wordt gereguleerd in een diermodel van dwangmatig hardlopen. De stabiele isovormen van 35 tot 37 kDa van ΔFosB worden inderdaad selectief geïnduceerd in de nucleus accumbens bij ratten die dwangmatig loopgedrag vertonen.
Biochemische identiteit van stabiele ΔFosB-isovormen
Zoals hierboven vermeld, vertonen de ΔFosB-isovormen die zich ophopen na chronische toediening van een misbruikmedicijn of dwangmatig hardlopen een molecuulmassa van 35-37 kDa. Ze kunnen worden onderscheiden van de 33 kDa isovorm van ΔFosB die snel maar tijdelijk wordt geïnduceerd na blootstelling aan een enkel geneesmiddel (Fig. 1) (14, 19, 22). Huidig bewijs suggereert dat de isovorm van 33 kDa de natieve vorm van het eiwit is, die is veranderd om de stabielere producten van 35 tot 37 kDa te vormen (19, 21). De aard van de biochemische modificatie die de onstabiele isovorm van 33 kDa omzet in de stabiele isovormen van 35 tot 37 kDa is echter onduidelijk gebleven. Er wordt gespeculeerd dat fosforylatie verantwoordelijk kan zijn (11). De inductie van ΔFosB wordt bijvoorbeeld verzwakt bij muizen die DARPP-32 missen, een in het striatum verrijkt eiwit (23, 24). Omdat DARPP-32 de katalytische activiteit van proteïnefosfatase-1 en proteïnekinase A reguleert (25, 26), suggereert de vereiste voor dit eiwit voor de normale accumulatie van de stabiele ΔFosB-isovormen een mogelijke rol voor fosforylatie bij het genereren van deze stabiele producten.
De rol van ΔFosB in gedragsplasticiteit voor misbruik van drugs
Inzicht in de rol van ΔFosB bij drugsverslaving is grotendeels verkregen door onderzoek met transgene muizen waarin ΔFosB selectief kan worden geïnduceerd in de nucleus accumbens en andere striatale gebieden van volwassen dieren (27, 28). Belangrijk is dat deze muizen ΔFosB selectief overexpressen in de dynorfine/substantie P-bevattende medium spiny neuronen, waar de drugs vermoedelijk het eiwit induceren. Het gedragsfenotype van de ΔFosB-overexpresserende muizen, dat in veel opzichten lijkt op dieren na chronische blootstelling aan drugs, wordt samengevat in Tabel 1. De muizen vertonen versterkte locomotorische reacties op cocaïne na acute en chronische toediening (28). Ze vertonen ook een verhoogde gevoeligheid voor de belonende effecten van cocaïne en morfine in plaatsconditioneringstests (11, 28) en zullen lagere doses cocaïne zelf toedienen dan nestgenoten die ΔFosB niet overexpressen.‡ Daarentegen vertonen deze dieren een normale geconditioneerde locomotorische sensitisatie voor cocaïne en normaal ruimtelijk leervermogen in de Morris-waterdoolhof (28). Deze gegevens geven aan dat ΔFosB de gevoeligheid van een dier voor cocaïne en mogelijk andere drugs vergroot en een mechanisme kan vormen voor relatief langdurige sensitisatie voor deze drugs.
 striatum
| Verhoogde locomotorische activering als reactie op acute en herhaalde toediening van cocaïne. |
| Verhoogde belonende reacties op cocaïne en morfine in plaatsconditionerende testen. |
| Verhoogde zelftoediening van lage doses cocaïne. |
| Verhoogde motivatie voor cocaïne in assays met een progressieve verhouding. |
| Verhoogde anxiolytische reacties op alcohol. |
| Verhoogd dwangmatig loopgedrag. |
Gebaseerd op gegevens uit referenties 28 en 29. †‡ §¶
Gedragsplasticiteit gemedieerd door ΔFosB in nucleus accumbens-dorsale striatum
Bovendien zijn er voorlopige aanwijzingen dat de effecten van ΔFosB zich mogelijk veel verder uitstrekken dan alleen de regulatie van de gevoeligheid voor drugs, en ook complexere gedragingen met betrekking tot het verslavingsproces beïnvloeden. Muizen die ΔFosB tot expressie brengen, leveren meer inspanning om cocaïne toe te dienen in progressieve zelfadministratietests. Dit suggereert dat ΔFosB dieren gevoeliger kan maken voor de motiverende eigenschappen van cocaïne en daardoor kan leiden tot een verhoogde kans op terugval na ontwenning .‡ Muizen die ΔFosB tot expressie brengen, vertonen ook een versterkt anxiolytisch effect van alcohol,§ een fenotype dat in verband is gebracht met een verhoogde alcoholinname bij mensen. Samen suggereren deze eerste bevindingen dat ΔFosB, naast het verhogen van de gevoeligheid voor drugs, kwalitatieve gedragsveranderingen teweegbrengt die drugszoekend gedrag bevorderen. ΔFosB zou dus kunnen functioneren als een aanhoudende "moleculaire schakelaar" die cruciale aspecten van de verslaafde toestand helpt initiëren en in stand houden. Een belangrijke vraag die momenteel wordt onderzocht, is of de accumulatie van ΔFosB tijdens blootstelling aan drugs het drugszoekend gedrag bevordert na langdurige onthoudingsperioden, zelfs nadat de ΔFosB-niveaus zijn genormaliseerd (zie hieronder).
Volwassen muizen die ΔFosB selectief overexpressen in de nucleus accumbens en het dorsale striatum vertonen ook een grotere dwangmatige loopactiviteit in vergelijking met controle-nestgenoten.† Deze observaties doen de interessante mogelijkheid rijzen dat de accumulatie van ΔFosB in deze neuronen een meer algemene rol speelt bij de vorming en het behoud van gewoonteherinneringen en dwangmatig gedrag, wellicht door de effectiviteit van neurale circuits waarin die neuronen functioneren te versterken.
ΔFosB hoopt zich op in bepaalde hersengebieden buiten de nucleus accumbens en het dorsale striatum na chronische blootstelling aan cocaïne. De amygdala en de mediale prefrontale cortex behoren tot de meest prominente van deze gebieden (15). Een belangrijk doel van het huidige onderzoek is om de bijdrage van de inductie van ΔFosB in deze gebieden aan het verslavingsfenotype te begrijpen.
Uit eerder werk aan fosB-knockout-muizen is gebleken dat deze dieren er niet in slagen sensibilisatie te ontwikkelen voor de locomotorische effecten van cocaïne, wat consistent is met de bevindingen van de hierboven genoemde muizen die ΔFosB tot overexpressie brengen (22). De fosB-mutanten vertoonden echter een verhoogde gevoeligheid voor de acute effecten van cocaïne, wat niet consistent is met deze andere bevindingen. De interpretatie van bevindingen met de fosB-mutanten wordt echter gecompliceerd door het feit dat deze dieren niet alleen ΔFosB missen, maar ook FosB van volledige lengte. Bovendien missen de mutanten beide eiwitten in de hersenen en vanaf de vroegste ontwikkelingsstadia. Recenter werk ondersteunt inderdaad conclusies van de muizen die ΔFosB tot overexpressie brengen: induceerbare overexpressie van een afgeknotte mutant van c-Jun, die fungeert als een dominante negatieve antagonist van ΔFosB, selectief in nucleus accumbens en dorsale striatum vertoont verminderde gevoeligheid voor de belonende effecten van cocaïne .¶ Deze bevindingen benadrukken de voorzichtigheid die moet worden betracht bij het interpreteren van resultaten van muizen met constitutieve mutaties en illustreren het belang van muizen met induceerbare en celtype-specifieke mutaties in onderzoeken naar plasticiteit in de hersenen van volwassenen.
Doelgenen voor ΔFosB
Omdat ΔFosB een transcriptiefactor is, veroorzaakt het eiwit vermoedelijk gedragsplasticiteit door veranderingen in de expressie van andere genen. ΔFosB wordt gegenereerd door alternatieve splicing van het fosB-gen en mist een deel van het C-terminale transactivatiedomein dat aanwezig is in het volledige FosB-gen. Daarom werd aanvankelijk verondersteld dat ΔFosB functioneert als een transcriptionele repressor (29). Onderzoek in celkweek heeft echter duidelijk aangetoond dat ΔFosB AP -1-gemedieerde transcriptie kan induceren of onderdrukken, afhankelijk van de specifieke AP-1-site die wordt gebruikt (21, 29-31). Het volledige FosB-gen heeft dezelfde effecten als ΔFosB op bepaalde promoterfragmenten, maar andere effecten op andere. Verder onderzoek is nodig om de mechanismen te begrijpen die ten grondslag liggen aan deze uiteenlopende werking van ΔFosB en FosB.
Onze groep heeft twee benaderingen gebruikt om doelgenen voor ΔFosB te identificeren. Eén daarvan is de kandidaatgenbenadering. We beschouwden aanvankelijk α-amino-3-hydroxy-5-methyl-4-isoxazolepropionic acid (AMPA) glutamaatreceptoren als vermeende doelen, gezien de belangrijke rol van glutamaterge transmissie in de nucleus accumbens. Werk tot nu toe heeft aangetoond dat een bepaalde AMPA-glutamaatreceptorsubeenheid, GluR2, een bonafide doelwit kan zijn voor ΔFosB (Fig. 2). GluR2-expressie, maar niet de expressie van andere AMPA-receptorsubeenheden, is verhoogd in nucleus accumbens (maar niet dorsaal striatum) bij overexpressie van ΔFosB (28), en expressie van een dominante negatieve mutant verzwakt het vermogen van cocaïne om het eiwit te induceren.¶ Bovendien bevat de promotor van het GluR2-gen een consensus AP-1-plaats die ΔFosB bindt (28). Overexpressie van GluR2 in de nucleus accumbens, door gebruik te maken van door virussen gemedieerde genoverdracht, verhoogt de gevoeligheid van een dier voor de belonende effecten van cocaïne, waardoor een deel van het fenotype wordt nagebootst dat wordt gezien in de muizen die ΔFosB tot expressie brengen (28). Inductie van GluR2 zou de verminderde elektrofysiologische gevoeligheid van nucleus accumbens-neuronen voor AMPA-receptoragonisten kunnen verklaren na chronische cocaïnetoediening (32), omdat AMPA-receptoren die GluR2 bevatten een verminderde algehele geleiding en verminderde Ca2+-permeabiliteit vertonen. Een verminderde gevoeligheid van deze neuronen voor excitatoire inputs kan dan de reacties op een misbruikt medicijn versterken. De manieren waarop dopaminerge en glutamaterge signalen in nucleus accumbens verslavend gedrag reguleren, blijven echter onbekend; dit vereist een begripsniveau van een neuraal circuit, dat nog niet beschikbaar is.
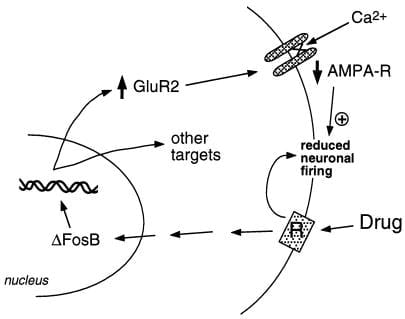
Figuur 2
De AMPA-glutamaatreceptor-subeenheid GluR2 is een vermeend doelwit voor ΔFosB. De afbeelding laat zien hoe ΔFosB-gemedieerde inductie van GluR2 de fysiologische responsiviteit van neuronen in de nucleus accumbens kan veranderen en kan leiden tot een verhoogde gevoeligheid voor drugs. Volgens dit schema produceren drugs hun acute bekrachtigende effecten door remming van neuronen in de nucleus accumbens. Bij herhaalde blootstelling induceren de drugs ΔFosB, dat talrijke doelgenen reguleert, waaronder GluR2. Dit verhoogt het aandeel AMPA-receptoren (AMPA-R) op neuronen in de nucleus accumbens dat de GluR2-subeenheid bevat, wat leidt tot een verminderde totale AMPA-stroom en een verminderde Ca2+-stroom. Deze verminderde prikkelbaarheid zou de neuronen gevoeliger kunnen maken voor de acute remmende effecten van de drugs en daarmee voor de bekrachtigende effecten ervan.
Een ander mogelijk doelwit voor ΔFosB is het gen dat codeert voor dynorfine . Zoals eerder vermeld, wordt dynorfine tot expressie gebracht in de subgroep van medium spiny neuronen in de nucleus accumbens die inductie van ΔFosB vertonen . Dynorfine lijkt te functioneren in een intercellulaire feedbacklus: de afgifte ervan remt de dopaminerge neuronen die de medium spiny neuronen innerveren, via κ-opioïde receptoren die aanwezig zijn op dopaminerge zenuwterminalen in de nucleus accumbens en ook op cellichamen en dendrieten in het ventrale tegmentale gebied (Fig. 3) (33-35). Dit idee is consistent met het vermogen van een κ-receptoragonist om, na toediening in een van deze twee hersengebieden, de beloning door drugs te verminderen (35).
Recent onderzoek heeft aangetoond dat ΔFosB de expressie van dynorfine verlaagt,‖ wat zou kunnen bijdragen aan de versterking van de beloningsmechanismen die worden waargenomen bij ΔFosB-inductie. Interessant is dat een andere door geneesmiddelen gereguleerde transcriptiefactor, CREB (cAMP response element binding protein) (2, 3), het tegenovergestelde effect heeft: het induceert de expressie van dynorfine in de nucleus accumbens en vermindert de belonende eigenschappen van cocaïne en morfine (4).**
Omdat de door geneesmiddelen geïnduceerde activering van CREB snel verdwijnt na toediening van het geneesmiddel, zou een dergelijke wederzijdse regulatie van dynorfine door CREB en ΔFosB de wederzijdse gedragsveranderingen kunnen verklaren die optreden tijdens de vroege en late fasen van ontwenning. Negatieve emotionele symptomen en een verminderde gevoeligheid voor het geneesmiddel overheersen in de vroege fasen van ontwenning, terwijl sensibilisatie voor de belonende en motiverende effecten van het geneesmiddel op latere tijdstippen de overhand krijgt.
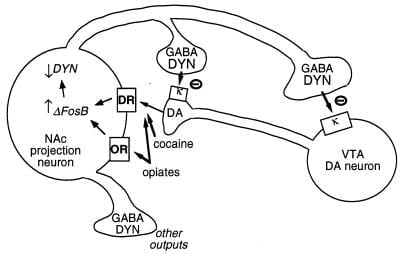
Figuur 3
Dynorfine is een vermeend doelwit voor ΔFosB. Getoond is een dopamine (DA) neuron in het ventrale tegmentale gebied (VTA) dat een klasse van GABAerge projectieneuronen in de nucleus accumbens (NAc) innerveert die dynorfine (DYN) tot expressie brengen. Dynorfine fungeert als feedbackmechanisme in dit circuit: dynorfine, vrijgegeven uit de terminals van de NAc-neuronen, werkt in op κ-opioïde receptoren die zich bevinden op de zenuwterminals en cellichamen van de DA-neuronen om hun functioneren te remmen. ΔFosB kan, door de dynorfine-expressie te remmen, deze feedbacklus downreguleren en de belonende eigenschappen van drugs versterken. Niet getoond is het omgekeerde effect van CREB op dit systeem: CREB versterkt de dynorfine-expressie en verzwakt daardoor de belonende eigenschappen van drugs (4). GABA, γ-aminoboterzuur; DR, dopaminereceptor; OR, opioïdereceptor.
De tweede benadering die wordt gebruikt om doelgenen voor ΔFosB te identificeren, omvat DNA-microarray-analyse. Induceerbare overexpressie van ΔFosB verhoogt of verlaagt de expressie van talrijke genen in de nucleus accumbens (36). Hoewel er nu aanzienlijk werk nodig is om elk van deze genen te valideren als fysiologische doelwitten van ΔFosB en om hun bijdrage aan het verslavingsfenotype te begrijpen, lijkt een belangrijk doelwit Cdk5 (cycline-afhankelijke kinase-5) te zijn. Cdk5 werd dus aanvankelijk geïdentificeerd als ΔFosB-gereguleerd door gebruik van microarrays, en later werd aangetoond dat het werd geïnduceerd in de nucleus accumbens en het dorsale striatum na chronische cocaïnetoediening (37). ΔFosB activeert het cdk5-gen via een AP-1-plaats die aanwezig is in de promotor van het gen (36). Samen ondersteunen deze gegevens een schema waarbij cocaïne via ΔFosB Cdk5-expressie in deze hersengebieden induceert. Inductie van Cdk5 lijkt de dopaminerge signalering ten minste gedeeltelijk te veranderen via verhoogde fosforylering van DARPP-32 (37), dat wordt omgezet van een remmer van proteïnefosfatase-1 in een remmer van proteïnekinase A na zijn fosforylatie door Cdk5 (26).
Rol van ΔFosB bij het bemiddelen van ‘permanente’ plasticiteit voor drugsmisbruik
Hoewel het ΔFosB-signaal relatief lang aanhoudt, is het niet permanent. ΔFosB degradeert geleidelijk en is na 1-2 maanden ontwenning niet meer in de hersenen aantoonbaar, ook al blijven bepaalde gedragsafwijkingen veel langer bestaan. Daarom lijkt ΔFosB op zichzelf niet in staat deze semipermanente gedragsafwijkingen te mediëren. De moeilijkheid om de moleculaire aanpassingen te vinden die ten grondslag liggen aan de extreem stabiele gedragsveranderingen die gepaard gaan met verslaving, is vergelijkbaar met de uitdagingen in het onderzoeksveld van leren en geheugen. Hoewel er elegante cellulaire en moleculaire modellen van leren en geheugen bestaan, is het tot nu toe niet mogelijk gebleken om moleculaire en cellulaire aanpassingen te identificeren die lang genoeg aanhouden om zeer stabiele gedragsmatige herinneringen te verklaren. ΔFosB is inderdaad de langstlevende aanpassing die bekend is in de volwassen hersenen, niet alleen als reactie op drugsgebruik, maar ook op elke andere verstoring (die geen laesies met zich meebrengt). Er zijn twee voorstellen ontwikkeld, zowel binnen het vakgebied van verslaving als binnen dat van leren en geheugen, om deze discrepantie te verklaren.
Een mogelijkheid is dat meer tijdelijke veranderingen in genexpressie, zoals die welke worden gemedieerd via ΔFosB of andere transcriptiefactoren (bijv. CREB), mogelijk leiden tot langdurigere veranderingen in neuronale morfologie en synaptische structuur. Zo gaat een toename van de dichtheid van dendritische stekels (met name een toename van tweekoppige stekels) gepaard met de toegenomen effectiviteit van glutamaterge synapsen bij hippocampale piramidale neuronen tijdens langetermijnpotentiëring (38-40), en loopt parallel met de verhoogde gedragsgevoeligheid voor cocaïne die wordt gemedieerd op het niveau van middelgrote stekelige neuronen van de nucleus accumbens (41). Het is niet bekend of dergelijke structurele veranderingen voldoende langdurig zijn om de zeer stabiele gedragsveranderingen te verklaren, hoewel deze laatste ten minste een maand na onthouding van de drug aanhouden. Recent bewijsmateriaal suggereert dat ΔFosB, en de inductie van Cdk5 door ΔFosB, een van de mediatoren is van door geneesmiddelen geïnduceerde veranderingen in de synaptische structuur in de nucleus accumbens (Fig. 4).‡‡ Zo voorkomt infusie van een Cdk5-remmer in de nucleus accumbens dat herhaalde blootstelling aan cocaïne de dichtheid van dendritische spines in dit gebied verhoogt. Dit is consistent met de opvatting dat Cdk5, dat in de hersenen in hoge concentraties voorkomt, de neurale structuur en groei reguleert (zie referenties 36 en 37). Het is mogelijk, hoewel geenszins bewezen, dat dergelijke veranderingen in de neuronale morfologie langer aanhouden dan het ΔFosB-signaal zelf.
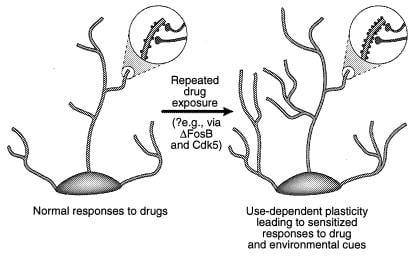
Figuur 4
Regulatie van de dendritische structuur door misbruik van drugs. Getoond wordt de uitzetting van de dendritische boom van een neuron na chronische blootstelling aan een drug, zoals is waargenomen bij cocaïne in de nucleus accumbens en prefrontale cortex (41). De vergrotingsgebieden vertonen een toename van dendritische stekels, waarvan wordt aangenomen dat deze optreedt in combinatie met geactiveerde zenuwuiteinden. Deze toename van dendritische wervelkolomdichtheid kan worden gemedieerd via ΔFosB en de daaruit voortvloeiende inductie van Cdk5 (zie tekst). Dergelijke veranderingen in de dendritische structuur, die vergelijkbaar zijn met die waargenomen in sommige leermodellen (bijv. Potentiëring op lange termijn), kunnen langlevende gesensibiliseerde reacties op misbruik van drugs of omgevingssignalen mediëren. [Gereproduceerd met toestemming van ref. 3 (Copyright 2001, Macmillian Magazines Ltd.)].
Een andere mogelijkheid is dat de tijdelijke inductie van een transcriptiefactor (bijv. ΔFosB, CREB) leidt tot meer permanente veranderingen in genexpressie door de modificatie van chromatine . Van deze en vele andere transcriptiefactoren wordt aangenomen dat ze de transcriptie van een doelgen activeren of onderdrukken door respectievelijk de acetylering of deacetylering van histonen in de omgeving van het gen te bevorderen (42). Hoewel dergelijke acetylering en deacetylering van histonen blijkbaar zeer snel kunnen plaatsvinden, is het mogelijk dat ΔFosB of CREB langdurigere aanpassingen teweegbrengen in het enzymatische mechanisme dat de histonacetylering reguleert. ΔFosB of CREB kunnen ook langdurigere veranderingen in genexpressie bevorderen door andere modificaties van chromatine te reguleren (bijv. DNA- of histonmethylering) die betrokken zijn bij de permanente veranderingen in gentranscriptie die tijdens de ontwikkeling optreden (zie referenties 42 en 43). Hoewel deze mogelijkheden speculatief blijven, zouden ze een mechanisme kunnen bieden waarmee tijdelijke aanpassingen aan een verslavend middel (of een andere verstoring) leiden tot gedragsmatige gevolgen die in wezen levenslang aanhouden.
Referenties
- ↵
- Nestler EJ,
- Hoop BT,
- Widnell KL
(1993) Neuron 11: 995–1006.
CrossRef Medline Web of Science
- ↵
- BerkeJD,
- Hyman SE
(2000) Neuron 25: 515–532.
CrossRef Medline Web of Science
- ↵
- Nestler EJ
(2001) Nat Rev Neurosci 2: 119-128.
CrossRef Medline Web of Science
- ↵
- Carlezon WA Jr,
- Thome J,
- Olson VG,
- Lane-Ladd SB,
- Brodkin ES,
- Hiroi N,
- Duman RS,
- Nooit RL,
- Nestler EJ
(1998) Wetenschap 282:2272-2275.
Abstract / GRATIS volledige tekst
-
- O'Donovan KJ,
- Tourtellotte WG,
- Molenbrandt J,
- Baraban JM
(1999) Trends Neurosci 22: 167–173.
CrossRef Medline Web of Science
- ↵
- Mackler SA,
- Korutla L,
- Cha XY,
- Koebbe MJ,
- Fournier KM,
- Bowers MS,
- Kalivas PW
(2000) J. Neurosci 20:6210-6217.
Abstract / GRATIS volledige tekst
- ↵
- Morgan JI,
- Curran T
(1995) Trends Neurosci 18: 66–67.
CrossRef Medline Web of Science
- ↵
- jonge ST,
- Porrino LJ,
- Iadarola MJ
(1991) Proc Natl Acad Sci VS 88: 1291–1295.
Abstract / GRATIS volledige tekst
-
- Graybiel AM,
- Moratalla R,
- RobertsonHA
(1990) Proc Natl Acad Sci VS 87: 6912–6916.
Abstract / GRATIS volledige tekst
-
- Hope B,
- Kosofsky B,
- Hyman SE,
- Nestler EJ
(1992) Proc Natl Acad Sci VS 89: 5764–5768.
Abstract / GRATIS volledige tekst
- ↵
- KelzMB,
- Nestler EJ
(2000) Huidige mening Neurol 13: 715–720.
CrossRef Medline Web of Science
- ↵
- Koob vriendin,
- Sanna PP,
- Bloei FE
(1998) Neuron 21: 467–476.
CrossRef Medline Web of Science
- ↵
- Wijze RA
(1998) Drugs-alcoholafhankelijkheid 51: 13–22.
CrossRef Medline Web of Science
- ↵
- Hoop BT,
- Nee HIJ,
- KelzMB,
- Zelf DW,
- Iadarola MJ,
- Nakabeppu Y,
- Duman RS,
- Nestler EJ
(1994) Neuron 13: 1235–1244.
CrossRef Medline Web of Science
- ↵
- Nye H,
- Hoop BT,
- Kelz M,
- Iadarola M,
- Nestler EJ
(1995) J Pharmacol Exp Ther 275:1671-1680.
Abstract / GRATIS volledige tekst
-
- Nee HIJ,
- Nestler EJ
(1996) Mol Pharmacol 49:636-645.
- ↵
- Moratalla R,
- Elibol B,
- Vallejo M,
- Graybiel AM
(1996) Neuron 17: 147–156.
CrossRef Medline Web of Science
- ↵
- Pich EM,
- Pagliusi SR,
- Tessari M,
- Talabot-Ayer D,
- Hooft van Huijsduijnen R,
- Chiamulera C
(1997) Wetenschap 275:83-86.
Abstract / GRATIS volledige tekst
- ↵
- Chen JS,
- Nee HIJ,
- KelzMB,
- Hiroi N,
- Nakabeppu Y,
- Hoop BT,
- Nestler EJ
(1995) Mol Pharmacol 48:880-889.
- ↵
- Hiroi N,
- Bruin J,
- Gij H,
- Saudou F,
- Vaidya VA,
- Duman RS,
- Greenberg IK,
- Nestler EJ
(1998) J. Neurosci 18:6952-6962.
Abstract / GRATIS volledige tekst
- ↵
- Chen J,
- KelzMB,
- Hoop BT,
- Nakabeppu Y,
- Nestler EJ
(1997) J. Neurosci 17:4933-4941.
Abstract / GRATIS volledige tekst
- ↵
- Hiroi N,
- Bruin J,
- Haile C,
- Gij H,
- Greenberg IK,
- Nestler EJ
(1997) Proc Natl Acad Sci VS 94: 10397–10402.
Abstract / GRATIS volledige tekst
- ↵
- Fienberg AA,
- Hiroi N,
- MermelsteinP,
- Lied WJ,
- Snyder GL,
- Nishi A,
- Cheramie A,
- O'Callaghan JP,
- Molenaar D,
- Cole DG,
- et al.
(1998) Wetenschap 281:838-842.
Abstract / GRATIS volledige tekst
- ↵
- Hiroi N,
- Feinberg A,
- Haile C,
- Greengard P,
- Nestler EJ
(1999) Eur J Neurosci 11: 1114–1118.
CrossRef Medline Web of Science
- ↵
- Greengard P,
- AllenPB,
- Nairn AC
(1999) Neuron 23: 435–447.
CrossRef Medline Web of Science
- ↵
- Bib JA,
- Snyder GL,
- Nishi A,
- Yan Z,
- Meijer L,
- Fienberg AA,
- Tsai LH,
- Kwon YT,
- Girault JA,
- Czernik AJ,
- et al.
(1999) Natuur (Londen) 402: 669–671.
- ↵
- Chen JS,
- KelzMB,
- Zeng GQ,
- Sakai N,
- Steffen C,
- Shockett PE,
- Picciotto M,
- Duman RS,
- Nestler EJ
(1998) Mol Pharmacol 54:495-503.
Abstract / GRATIS volledige tekst
- ↵
- KelzMB,
- Chen JS,
- Carlezon WA,
- Whisler K,
- Gilden L,
- Beckmann AM,
- Steffen C,
- Zhang YJ,
- Marotti L,
- Zelf SW,
- et al.
(1999) Natuur (Londen) 401: 272–276.
- ↵
- Dobrazanski P,
- Noguchi T,
- Kovary K,
- Rizzo CA,
- Lazo PS,
- Bravo R
(1991) Mol Cell Biol 11: 5470-5478.
Abstract / GRATIS volledige tekst
-
- Nakabeppu Y,
- Nathans D
(1991) Cel 64:751-759.
CrossRef Medline Web of Science
- ↵
- Yen J,
- Wijsheid RM,
- Tratner ik,
- Verma IM
(1991) Proc Natl Acad Sci VS 88: 5077–5081.
Abstract / GRATIS volledige tekst
- ↵
- Witte FJ,
- Hu XT,
- Zhang XF,
- Wolf MIJ
(1995) J Pharmacol Exp Ther 273:445-454.
Abstract / GRATIS volledige tekst
- ↵
- Hyman SE
(1996) Neuron 16: 901–904.
CrossRef Medline Web of Science
-
- Kreek MJ
(1997) Pharmacol Biochem Gedrag 57:551-569.
CrossRef Medline Web of Science
- ↵
- Shippenberg TS,
- Rea W
(1997) Pharmacol Biochem Gedrag 57:449-455.
CrossRef Medline Web of Science
- ↵
- Chen JS,
- Zhang YJ,
- KelzMB,
- Steffen C,
- Ang ES,
- Zeng L,
- Nestler EJ
(2000) J. Neurosci 20:8965-8971.
Abstract / GRATIS volledige tekst
- ↵
- Bib JA,
- Chen JS,
- Taylor JR,
- Svenningsson P,
- Nishi A,
- Snyder GL,
- Yan Z,
- Sagawa ZK,
- Nairn AC,
- Nestler EJ,
- et al.
(2001) Natuur (Londen) 410: 376–380.
- ↵
- Luscher C,
- Nicol RA,
- Malenka RC,
- Muller D
(2000) Nat Neurosci 3:545-550.
CrossRef Medline Web of Science
-
- MalinowR,
- Mainen ZF,
- Hayashi Y
(2000) Curr Opin Neurobiol 10: 352-357.
CrossRef Medline Web of Science
- ↵
- Scannevin RH,
- HuganirRL
(2000) Nat Rev Neurosci 1: 133-141.
CrossRef Medline Web of Science
Robinson, TE & Kolb, B. (1999) (1997) Eur. J. Neurosci. 11, 1598–1604.
- ↵
- Carey M,
- Kleine ST
(2000) Transcriptionele regulatie bij eukaryoten (Cold Spring Harbor Lab. Press, Plainview, NY).
- ↵
- Spencer VA,
- David JR
(1999) Gen 240: 1–12.
CrossRef Medline Web of Science
 Facebook
 Twitter
- Google+
 CiteULike
 Heerlijk
 Digg
 Mendeley
Door HighWire Press gehoste artikelen die dit artikel citeren
- Natural and Drug Rewards handelen in op gemeenschappelijke neurale plasticiteitsmechanismen met {Delta} FosB als belangrijke bemiddelaar J. Neurosci. 2013 33 (8) 3434-3442
- Drugs, misdaad en de epigenetica van hedonische allostasis Journal of Contemporary Criminal Justice 2012 28 (3) 314-328
- Abstract
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Abstract
- Volledige tekst (HTML)
- Volledige tekst (PDF)
- Morfine activeert de E Twenty Six-achtige transcriptiefactor-1/serumresponsfactorroute via extracellulaire signaalgereguleerde kinases 1/2 in F11-cellen afkomstig van dorsale wortelganglia-neuronen J. Pharmacol. Exp. Daar. 2012 342 (1) 41-52
- Moleculair mechanisme voor een gateway-medicijn: epigenetische veranderingen geïnitieerd door nicotine-prime-genexpressie door cocaïne Sci Vertaal Med 2011 3 (107) 107ra109
- Verbeterde zelftoediening van sucrose en cocaïne en cue-geïnduceerd zoeken naar geneesmiddelen na verlies van VGLUT2 in Dopamine-neuronen van de middenhersenen bij muizen J. Neurosci. 2011 31 (35) 12593-12603
- Chronische intermitterende hypoxie verhoogt de bloeddruk en de expressie van FosB/{Delta}FosB in centrale autonome regio's Ben. J. Fysiool. Regel. Integreer. Comp. Fysiool. 2011 301 (1) R131-R139
- Afwezigheid van de GPR37 / PAEL-receptor schaadt striatale Akt- en ERK2-fosforylering, {Delta} FosB-expressie en geconditioneerde plaatsvoorkeur voor amfetamine en cocaïne FASEB J. 2011 25 (6) 2071-2081
- De relatie tussen de duur van de initiële blootstelling aan alcohol en het voortbestaan van de moleculaire tolerantie is duidelijk niet-lineair J. Neurosci. 2011 31 (7) 2436-2446
- In vivo bioluminescentiebeeldvorming onthult redox-gereguleerde activatorproteïne-1-activering in paraventriculaire kern van muizen met renovasculaire hypertensie Hypertensie 2011 57 (2) 289-297
- Striatale overexpressie van {Delta} FosB reproduceert chronische door levodopa geïnduceerde onvrijwillige bewegingen J. Neurosci. 2010 30 (21) 7335-7343
- Epigenetische bemiddeling van omgevingsinvloeden bij ernstige psychotische stoornissen Schizophr Stier 2009 35 (6) 1045-1056
- Op DNA gebaseerde MRI-sondes voor specifieke detectie van chronische blootstelling aan amfetamine in levende hersenen J. Neurosci. 2009 29 (34) 10663-10670
- Veranderde plasticiteit van de dendritische wervelkolom bij door cocaïne teruggetrokken ratten J. Neurosci. 2009 29 (9) 2876-2884
- Overexpressiescherm in Drosophila identificeert neuronale rollen van GSK-3 {bèta} / shaggy als regulator van AP-1-afhankelijke ontwikkelingsplasticiteit Genetica 2008 180 (4) 2057-2071
- Transcriptie MRI: een nieuwe kijk op de levende hersenen Neurowetenschapper 2008 14 (5) 503-520
- {Delta}FosB-inductie in de orbitofrontale cortex bemiddelt tolerantie voor door cocaïne geïnduceerde cognitieve disfunctie J. Neurosci. 2007 27 (39) 10497-10507
- Blijvende kwetsbaarheid voor herstel van methamfetamine-zoekgedrag in gliale cellijn-afgeleide neurotrofische factor mutante muizen FASEB J. 2007 21 (9) 1994-2004
- {Delta} FosB in de Nucleus Accumbens reguleert voedselversterkt instrumenteel gedrag en motivatie J. Neurosci. 2006 26 (36) 9196-9204
- Regulering van {Delta} FosB-stabiliteit door fosforylering. J. Neurosci. 2006 26 (19) 5131-5142
- Expressie van gemuteerde NMDA-receptoren in dopamine D1-receptorbevattende cellen voorkomt overgevoeligheid voor cocaïne en vermindert de voorkeur voor cocaïne J. Neurosci. 2005 25 (28) 6651-6657
- D1 Dopamine Receptoren Moduleren {Delta} FosB-inductie in rattenstriatum na intermitterende morfine-toediening J. Pharmacol. Exp. Daar. 2005 314 (1) 148-154
- Neurobiologie van muizen geselecteerd voor activiteiten met een hoog vrijwillig wielverloop Integreer. Comp. Biol. 2005 45 (3) 438-455
- Effecten van watergebrek en rehydratatie op c-Fos- en FosB-kleuring in de supraoptische kern van de rat en het gebied van de lamina terminalis Ben. J. Fysiool. Regel. Integreer. Comp. Fysiool. 2005 288 (1) R311-R321
- Transcriptionele inductie van FosB/{Delta}FosB-gen door mechanische stress in osteoblasten J Biol Chem 2004 279 (48) 49795-49803
- Inductie van {Delta}FosB in beloningsgerelateerde hersenstructuren na chronische stress J. Neurosci. 2004 24 (47) 10594-10602
- Sim1-gendosering moduleert de homeostatische voedingsreactie op verhoogd voedingsvet bij muizen Ben. J. Fysiol. Endocrinol. metab. 2004 287 (1) E105-E113
- DNA-microarray-analyse van genexpressie in astrocyten van de menselijke oogzenuw als reactie op hydrostatische druk Fysiool. Genomica 2004 17 (2) 157-169
- Superoxide is betrokken bij de activering van het centrale zenuwstelsel en de sympatho-excitatie van door een hartinfarct geïnduceerd hartfalen circ. Res. 2004 94 (3) 402-409
- Adenosine A2A-receptoren bij neuroadaptatie aan herhaalde dopaminerge stimulatie: implicaties voor de behandeling van dyskinesieën bij de ziekte van Parkinson Neurologie 2003 61 (90116) S74-81
- Cytoplasmatische versus nucleaire lokalisatie van Fos-gerelateerde eiwitten in de kikker, Rana esculenta, Testis: in vivo en direct in vitro effect van een gonadotropine-afgevende hormoonagonist Biol. Reproductie 2003 68 (3) 954-960
- Periadolescente muizen vertonen verbeterde Delta FosB-opregulatie als reactie op cocaïne en amfetamine J. Neurosci. 2002 22 (21) 9155-9159
- Delta FosB reguleert het draaien van wielen J. Neurosci. 2002 22 (18) 8133-8138
- CREB-activiteit in de nucleus accumbens-schaal bestuurt de gating van gedragsreacties op emotionele stimuli Proc. Nat. Acad. Wetenschap VS 2002 99 (17) 11435-11440
- Psychogenomics: kansen om verslaving te begrijpen J. Neurosci. 2001 21 (21) 8324-8327