Neurosci Biobehav Rev. 2011 jan;35(3):939-55. doi: 10.1016/j.neubiorev.2010.10.014. Epub 2010 nov 2.
- 1Bernard B. Brodie Afdeling Neurowetenschappen, Universiteit van Cagliari, Cittadella Universitaria, 09042 Monserrato, CA, Italië. [e-mail beveiligd]
ABSTRACT
Oxytocine is een krachtige inductor van erectie van de penis wanneer het in het centrale zenuwstelsel wordt geïnjecteerd. Bij mannelijke ratten is het meest gevoelige hersengebied voor het pro-erectiele effect van oxytocine de paraventriculaire kern van de hypothalamus. Deze kern en omliggende regio's bevatten de cellichamen van alle oxytocinerge neuronen die naar extra-hypothalamische hersengebieden en het ruggenmerg projecteren. Deze beoordeling laat zien dat oxytocine de erectie van de penis ook induceert wanneer het in sommige van deze gebieden wordt geïnjecteerd (bijv. Ventraal tegmentaal gebied, ventrale subiculum van de hippocampus, posteromediale corticale kern van de amygdala en thoraco-lumbale ruggenmerg). Micro-injectieonderzoeken in combinatie met intra-cerebrale microdialyse en dubbele immunofluorescentie-onderzoeken suggereren dat oxytocine in deze gebieden direct of indirect (voornamelijk via glutaminezuur) mesolimbische dopaminerge neuronen activeert. Dopamine vrijgemaakt in de nucleus accumbens activeert op zijn beurt neurale paden die leiden tot de activering van incortoon-hypothalamische dopaminerge neuronen in de paraventriculaire kern. Dit activeert niet alleen oxytocinerge neuronen die naar het ruggenmerg projecteren en de erectie van de penis, maar ook die naar de bovengenoemde extra-hypothalamische gebieden, die direct of indirect (via glutaminezuur) de activiteit van mesolimbische dopaminerge neuronen moduleren die de motivatie en beloning beheersen. Samen kunnen deze neurale paden een complex hypothetisch circuit vormen, dat niet alleen een rol speelt in de consumptieve fase van seksuele activiteit (erectiele functie en copulatie), maar ook in de motiverende en belonende aspecten van de anticiperende fase van seksueel gedrag.
1.Introduction
Een erectie van de penis is een mannelijke seksuele respons die een sleutelrol speelt bij de voortplanting van zoogdieren, waaronder de mens, en die ook kan worden waargenomen in contexten die niet strikt gerelateerd zijn aan de voortplanting. Afhankelijk van de context waarin een erectie van de penis optreedt, zijn verschillende centrale en perifere neurale en/of humorale mechanismen betrokken bij de regulatie ervan (zie Meisel en Sachs, 1994; Argiolas en Melis, 1995, 2004, 2005; Sachs, 2000, 2007; McKenna, 2000; Giuliano en Rampin, 2000, 2004; Andersson, 2001; Melis en Argiolas, 1995a, 2003; Hull et al., 2002). Tot de centrale neurotransmitters en neuropeptiden die de erectie van de penis reguleren, behoren dopamine, serotonine, exciterende aminozuren, stikstofmonoxide, adrenocorticotroop hormoon, oxytocine en opioïde peptiden . Ze kunnen de erectie van de penis bevorderen of remmen door in te werken op verschillende hersengebieden, namelijk het mediale preoptische gebied, de paraventriculaire kern van de hypothalamus, het ventrale tegmentale gebied, de hippocampus, de amygdala, de bedkern van de stria terminalis, de nucleus accumbens, de medulla oblongata en het ruggenmerg (Tabel 1) (zie Meisel en Sachs, 1994; Witt en Insel, 1994; Stancampiano et al., 1994; Argiolas en Melis, 1995, 2005; Argiolas, 1999; Bancila et al., 2002; Giuliano en Rampin, 2000, McKenna, 2000; Andersson, 2001; Hull et al., 2002; Coolen et al., 2004).
Oxytocine, het neurohypophyseale peptide dat bekend staat om zijn hormonale rol in lactatie en partus, is aanwezig in vrouwen en mannen, niet alleen in neuronen met cellichamen die zich bevinden in de paraventriculaire en supraoptische kernen van de hypothalamus die naar de neurohypofyse projecteren, maar ook in neuronen die projecteren van de paraventriculaire kern en omliggende structuren tot extrahypothalamische hersengebieden (dwz het septum, het ventrale tegmentale gebied, de hippocampus, de amygdala, de medulla oblongata en het ruggenmerg). Deze neuronen worden verondersteld betrokken te zijn bij talrijke centrale functies, zoals geheugen, leren, affiliatief en sociaal-seksueel gedrag, inclusief erectie en copulerend gedrag van de penis (zie Buijs, 1978; Sofroniew, 1983; Argiolas en Gessa, 1991; Pedersen et al. ., 1992; Carter, 1992; Wagner en Clemens, 1993; Ivell en Russel, 1995; Carter et al., 1997; Tang et al., 1998; Veronneau-Longueville et al., 1999). Inderdaad, oxytocine faciliteert erectiele functie en mannelijk seksueel gedrag bij muizen, ratten, konijnen en apen (zie Argiolas en Gessa, 1991; Carter, 1992; Pedersen et al., 1992; Argiolas en Melis, 1995, 2004; Argiolas, 1999). Dit kan ook bij mensen voorkomen, omdat plasma-oxytocine wordt verhoogd door seksuele stimuli, vooral bij ejaculatie (Carmichael et al., 1987; Murphy et al., 1987) en door de manipulatie van de borst en van de geslachtsdelen, die gewoonlijk tijdens seksuele handelingen optreden. geslachtsgemeenschap (Tindall, 1974).
Een faciliterend effect van oxytocine op mannelijk seksueel gedrag werd voor het eerst aangetoond door het vermogen van intraveneuze oxytocine om de latentie tot de eerste ejaculatie te verminderen en de seksuele uitputting van mannelijke konijnen gepaard met receptieve vrouwen (Melin en Kihlstrom, 1963) te vertragen. De seksuele effecten van oxytocine werden echter pas in de jaren tachtig definitief herkend. Oxytocine, centraal toegediend in hoeveelheden van nanogrammen, werd vervolgens gevonden in staat om erectie van de penis te induceren (Argiolas et al., 1985, 1986) en om copulatiegedrag (Arletti et al., 1985) in mannelijke ratten te verbeteren en om lordose bij vrouwelijke ratten te verhogen (Arletti en Bertolini, 1985; Caldwell et al., 1986), blijkbaar door inwerken op uterine-type oxytocinerge receptoren (zie Argiolas en Melis, 1995, 2004; Argiolas, 1999; Melis en Argiolas, 2003; en referenties daarin). Oxytocine verbetert seksueel gedrag niet alleen bij seksueel sterke mannelijke ratten (Arletti et al., 1985), maar ook bij oudere mannelijke ratten (Arletti et al., 1990) en bij dominante, maar niet in ondergeschikte, mannelijke eekhoornapen (Winslow en Insel) , 1991).
Het erectiebevorderende effect van oxytocine is testosteronafhankelijk, aangezien het wordt opgeheven door hypofysectomie en castratie, en hersteld door suppletie met testosteron of de metabolieten ervan, estradiol en 5'-dihydrotestosteron, die samen worden toegediend (Melis et al., 1994a). Het meest gevoelige hersengebied voor het induceren van een peniserectie door oxytocine is de paraventriculaire kern van de hypothalamus (Melis et al., 1986), van waaruit alle extra-hypothalamische oxytocinerge projecties afkomstig zijn (zie hierboven). Hier bleek oxytocine in staat te zijn een peniserectie (en geeuwen) te induceren bij injecties in doses zo laag als 3 pmol (zie paragraaf 2.1 hieronder). Oxytocine induceerde ook een erectie van de penis wanneer het bilateraal werd geïnjecteerd in het CA1-gebied van de hippocampus, maar niet in het dorsale subiculum (zie paragraaf 2.3 hieronder), het laterale septum, de nucleus caudatus, het mediale preoptische gebied, de ventromediale nucleus van de hypothalamus en de nucleus supraopticus (Melis et al., 1986). Wat betreft het mechanisme waarmee oxytocine in de nucleus paraventricularis deze seksuele respons induceert, suggereren talrijke studies dat oxytocine zijn eigen neuronen activeert. In lijn met deze hypothese verhoogt seksuele interactie de hoeveelheid FOS, het genproduct van het onmiddellijk vroege gen c-fos in paraventriculaire oxytocinerge neuronen die projecteren naar het ruggenmerg, die betrokken zijn bij de controle van de peniserectie (zie Witt en Insel, 1994 en referenties daarin), en seksuele impotentie (bijvoorbeeld het onvermogen van een volwassen mannelijke rat om te copuleren met een ovariectomiseerde, met oestrogeen en progesteron geprimeerde, ontvankelijke vrouwelijke rat) is bij de mannelijke rat in verband gebracht met lage niveaus van oxytocine-mRNA in de paraventriculaire kern van de hypothalamus (Arletti et al., 1997).
Het is momenteel onduidelijk of oxytocine de anticipatiefase of de consumptiefase van seksueel gedrag beïnvloedt . Aangezien oxytocine een erectie van de penis veroorzaakt en het belangrijkste effect van oxytocine op copulatiegedrag een afname van het interval na de ejaculatie bij mannelijke ratten is (Arletti et al., 1985), is het aannemelijk dat het peptide de seksuele prestaties verbetert. Omdat oxytocine echter ook de sociaal-seksuele interactie vergroot (zie Pedersen et al., 1992; Carter et al., 1997; Ivell en Russel, 1995), en omdat oxytocine-receptorantagonisten niet-contacterecties voorkomen (Melis et al., 1999a), die worden beschouwd als een indicator van seksuele opwinding (zie Sachs, 1997, 2000, 2007; Melis et al., 1998, 1999b en de daarin genoemde referenties), kan een mogelijke rol van oxytocine bij seksuele opwinding en seksuele motivatie niet worden uitgesloten.
Deze review vat de gepubliceerde en niet-gepubliceerde resultaten samen van recente studies die aantonen dat oxytocine niet alleen een erectie van de penis induceert wanneer het in de paraventriculaire kern van de hypothalamus wordt geïnjecteerd, maar ook in andere extra-hypothalamische hersengebieden, zoals het ventrale tegmentale gebied (Melis et al., 2007, 2009a; Succu et al., 2008), het ventrale subiculum van de hippocampus en de posterieure kern van de amygdala (Melis et al., 2009b, 2010). Deze gebieden zijn belangrijke onderdelen van het limbisch systeem en spelen vermoedelijk een cruciale rol in motivatie- en beloningsprocessen. Deze studies tonen aan dat oxytocine deelneemt aan neurale circuits, waaronder andere neurotransmitters zoals dopamine en glutaminezuur, en andere hersengebieden dan de paraventriculaire kern, bijvoorbeeld het ventrale tegmentale gebied, de nucleus accumbens, de hippocampus en nog te identificeren gebieden. Deze circuits bemiddelen waarschijnlijk een interactie tussen het mesolimbische en het incerto-hypothalamische dopaminerge systeem en spelen niet alleen een rol in de consumptiefase van mannelijk seksueel gedrag (bijvoorbeeld erectie en geslachtsgemeenschap), maar ook in seksuele motivatie en seksuele opwinding. Daarmee bieden ze een neuraal substraat voor het verklaren van de motivationele en belonende eigenschappen van seksuele activiteit.
2. Oxytocine beïnvloedt de erectie van de penis door in verschillende hersengebieden te werken
2.1. De paraventriculaire kern van de hypothalamus
Zoals hierboven werd vermeld, werd al snel de paraventriculaire kern van de hypothalamus geïdentificeerd als het hersengebied dat het meest gevoelig is voor het pro-erectiele effect van oxytocine. Wanneer het eenzijdig in deze kern werd geïnjecteerd, werd oxytocine actief gevonden bij doses zo laag als 3 ng (3 pmol) (Melis et al., 1986). Structuur-activiteitsrelatiestudies onthulden dat door oxytocine geïnduceerde erectie van de penis werd gemedieerd door uterinetype oxytocine-receptoren, gekoppeld aan een Ca2 + influx in de cellichamen van oxytocinerge neuronen die naar extra-hypothalamische hersengebieden projecteren en naar de activering van stikstofoxide-synthase. Stikstofoxide op zijn beurt door op te treden als een intracellulaire boodschapper met een nog onbekend mechanisme (niet met guanylaatcyclase) leidt tot de activering van oxytocinerge neuronen die naar het ruggenmerg en extra-hypothalamische hersengebieden projecteren, waardoor de erectie van de penis wordt geïnduceerd (Fig. 1) (zie hieronder en Argiolas en Melis, 1995, 2004, 2005 en referenties daarin). Het vermogen van oxytocine om zijn eigen neuronen te activeren
Fig. 1. (MISSING) Schematische weergave van oxytocinerge neuronen, die hun oorsprong vinden in de paraventriculaire kern van de hypothalamus en projecteren op extra-hypothalamische hersengebieden, zoals het ruggenmerg, de VTA, de hippocampus, de amygdala, enz. De activatie van deze neuronen door dopamine, excitatoire aminozuren, oxytocine zelf, hexarelin-analogen en VGF-afgeleide peptiden leiden tot erectie van de penis, die kan worden verminderd en / of opgeheven door de stimulatie van GABAergic, opioïde en cannabinoïde CB1-receptoren. De activering van oxytocinerge neuronen is secundair aan de activering van stikstofoxide-synthase dat aanwezig is in deze neuronen. Inderdaad, endogeen stikstofoxide gevormd door de stimulatie van dopamine, excitatorisch aminozuur of oxytocine-receptoren of exogeen stikstofoxide, zoals afgeleid van stikstofoxide-donoren direct gegeven in de paraventriculaire kern, activeert oxytocinerge neuronen door een nog niet geïdentificeerd mechanisme, kennelijk niet gerelateerd aan de stimulatie van guanylaatcyclase. Dit veroorzaakt op zijn beurt de afgifte van oxytocine in het ruggenmerg en in extra-hypothalamische hersengebieden. Een aantal details over de mechanismen waarmee oxytocine de erectie van de penis induceert wanneer ze in deze gebieden worden vrijgegeven, bijvoorbeeld de VTA, het ventrale submiculum en de amygdala worden beschreven in de respectieve delen van het hersengebied. Hier werkt oxytocine op zijn eigen receptoren en verhoogt de NO-productie, wat leidt tot erectie van de penis zoals gevonden in de PVN. Echter, in afwijking van de PVN activeert NO in de caudale VTA NO guanylaatcyclase. Dit veroorzaakt een toename van de cGMP-concentratie die leidt tot de activering van mesolimbische dopaminerge neuronen en tot de erectie van de penis. In de VS NO activeert glutamaterge neuronen die naar gebieden buiten de hippocampus projecteren, inclusief de VTA. Glutaminezuur in de VTA activeert op zijn beurt mesolimbische dopaminerge neuronen zoals gevonden met oxytocine. Mechanismen vergelijkbaar met die hierboven beschreven werken waarschijnlijk ook wanneer erectie van de penis plaatsvindt in fysiologische contexten, namelijk wanneer mannelijke ratten worden geplaatst in de aanwezigheid van een ontoegankelijk ontvankelijk vrouwtje (bijv. Niet-contact erecties) of tijdens copulatie.
De aanwezigheid van oxytocine in de nucleus paraventricularis werd ondersteund door studies die aantoonden dat: (1) oxytocinereceptoren aanwezig zijn in deze hypothalamusnucleus (Freund-Mercier et al., 1987; Freund-Mercier en Stoeckel, 1995); (2) oxytocine zijn eigen afgifte in vitro en in vivo bevordert (Freund-Mercier en Richard, 1981, 1984; Moos et al., 1984); en (3) oxytocine zijn eigen neuronen prikkelt door in te werken in de nucleus paraventricularis (Yamashita et al., 1987). Bovendien zijn er ook oxytocinerge synapsen geïdentificeerd die inwerken op de cellichamen van magnocellulaire oxytocinerge neuronen in de nucleus paraventricularis en de nucleus supraopticus van de hypothalamus (Theodosis, 1985). Ten slotte leidt de vernietiging van centrale oxytocinerge neuronen door elektrolytische of chemische excitotoxische laesies van de nucleus paraventricularis, waardoor het oxytocinegehalte in het centrale zenuwstelsel en het ruggenmerg volledig verdwijnt, niet alleen tot het verdwijnen van het erectiebevorderende effect van oxytocine, maar ook tot een verminderde door medicatie geïnduceerde erectie en erectie zonder direct contact (zie hieronder en Argiolas et al., 1987a,b; Liu et al., 1997 en de daarin genoemde referenties). Vergelijkbare resultaten als die gevonden bij laesies van de nucleus paraventricularis worden ook gevonden met krachtige en selectieve oxytocine-receptorantagonisten. Deze stoffen, geïnjecteerd in nanogramhoeveelheden in de paraventriculaire kern, verhinderden inderdaad volledig de door oxytocine geïnduceerde erectie van de penis. Toediening in de laterale ventrikels verhinderde niet alleen de door oxytocine zelf geïnduceerde erectie, maar ook de door geneesmiddelen geïnduceerde erectie (zie paragraaf 3 hieronder en Argiolas en Melis, 1995, 2004, 2005 en de daarin genoemde referenties) en erecties zonder fysiek contact (Melis et al., 1999a). Bovendien bleken ze zeer effectief in het belemmeren van het copulatiegedrag van seksueel potente mannelijke ratten (Argiolas et al., 1988). Verder verhoogt seksuele interactie de FOS-productie, het genproduct van het immediate early gene c-fos in paraventriculaire oxytocinerge neuronen die projecteren naar het ruggenmerg en betrokken zijn bij de controle van de peniserectie (zie Witt en Insel, 1994 en de daarin genoemde referenties). Ten slotte is seksuele impotentie (bijvoorbeeld het onvermogen van een volwassen mannelijke rat om te copuleren met een ontvankelijke vrouwelijke rat die is voorbereid met oestrogeen en progesteron) bij mannelijke ratten ook in verband gebracht met lage niveaus van oxytocine-mRNA en stikstofmonoxide-synthase in de paraventriculaire kern van de hypothalamus (Benelli et al., 1995; Arletti et al., 1997) (voor een uitgebreid overzicht van deze studies zie Argiolas, 1999; Argiolas en Melis, 2004, 2005).
2.2. Het ventrale tegmentale gebied
Het ventrale tegmentale gebied werd pas recent ontdekt als een hersengebied waar oxytocine een erectie van de penis induceert . Dit gebied bevat oxytocinerge zenuwuiteinden afkomstig uit de nucleus paraventricularis en oxytocinereceptoren (Freund-Mercier et al., 1987; Vaccari et al., 1998). Meer specifiek bleek oxytocine in staat een erectie van de penis te induceren wanneer het unilateraal, maar niet in het rostrale ventrale tegmentale gebied werd geïnjecteerd, en wel op een dosisafhankelijke manier (Melis et al., 2007). De actieve doses waren hoger dan die nodig waren bij injectie in de nucleus paraventricularis en vergelijkbaar met de doses die een erectie van de penis induceren bij injectie in het ventrale subiculum van de hippocampus of in de posteromediale corticale kern van de amygdala (zie hieronder). Het erectiebevorderende effect wordt kennelijk gemedieerd door de activering van mesolimbische dopaminerge neuronen die projecteren naar de schil van de nucleus accumbens, die op hun beurt nog onbekende neurale paden activeren die projecteren naar de incerto-hypothalamische dopaminerge neuronen die inwerken op paraventriculaire oxytocinerge neuronen die de peniserectie mediëren (Melis et al., 2007, 2009a).
Wat betreft het mechanisme waarmee oxytocine de dopaminerge neurotransmissie in het ventrale tegmentale gebied activeert, suggereren de beschikbare gegevens dat oxytocine oxytocinerge receptoren stimuleert die zich in de cellichamen van mesolimbische dopaminerge neuronen bevinden. Dit verhoogt de Ca2+-instroom in de cellichamen van dopaminerge neuronen, waardoor stikstofmonoxide-synthase wordt geactiveerd (Succu et al., 2008). In tegenstelling tot de paraventriculaire kern (zie paragraaf 3 hieronder), activeert stikstofmonoxide op zijn beurt guanylaatcyclase, waardoor de concentratie van cyclisch GMP toeneemt. In overeenstemming met dit mechanisme zorgde de injectie van d(CH2)5Tyr(Me)2-Orn8-vasotocine, een krachtige oxytocine-antagonist, of S-methyl-thio-l-citrulline, een krachtige remmer van neuronale stikstofmonoxide-synthase, in het caudale ventrale tegmentale gebied vóór oxytocine ervoor dat de peniserectie en de door oxytocine geïnduceerde toename van de extracellulaire dopamineconcentratie in de schil van de nucleus accumbens werden opgeheven. Bovendien induceert 8-bromo-cyclisch GMP, een actief fosfodiesterase-resistent cyclisch GMP-analoog, een erectie van de penis wanneer het in het caudale ventrale tegmentale gebied wordt geïnjecteerd en verhoogt het de extracellulaire dopamineconcentratie in de schil van de nucleus accumbens, zoals ook werd waargenomen bij injectie van oxytocine in het caudale ventrale tegmentale gebied (Succu et al., 2008; Melis et al., 2009a) (zie ook figuur 2).
In lijn met dit mechanisme vermindert haloperidol, een krachtige dopamine D2-receptorantagonist, geïnjecteerd in de schil van de nucleus accumbens de peniserectie die wordt opgewekt door oxytocine, geïnjecteerd in het ventrale tegmentale gebied (Melis et al., 2007). Het bovenstaande mechanisme wordt ook ondersteund door dubbele immunofluorescentiestudies, waaruit blijkt dat oxytocinevezels de cellichamen van dopaminerge neuronen in het caudale ventrale tegmentale gebied beïnvloeden, die eerder waren gelabeld met de retrograde tracer Fluorogold, geïnjecteerd in de schil van de nucleus accumbens (Melis et al., 2007; Succu et al., 2008). De activering van deze dopaminerge neuronen en van dopaminereceptoren in de nucleus accumbens leidt op zijn beurt tot de activering van nog te identificeren neurale paden, die incerto-hypothalamische dopaminerge neuronen stimuleren om dopamine vrij te geven in de nucleus paraventricularis, waardoor oxytocinerge neuronen die projecteren naar het ruggenmerg en de erectie van de penis mediëren (zie boven en Melis et al., 2007; Succu et al., 2007, 2008). Inderdaad, oxytocine geïnjecteerd in het caudale ventrale tegmentale gebied in een dosis die een erectie van de penis veroorzaakte, verhoogde de extracellulaire dopamineconcentratie in het dialysaat verkregen niet alleen uit de nucleus accumbens, maar ook uit de nucleus paraventricularis (Succu et al., 2007).
2.3. De hippocampus
Het CA1-gebied van de hippocampus was het andere hersengebied rijk aan oxytocinerge vezels en receptoren dat werd geïdentificeerd in eerdere studies waarin de injectie van oxytocine een erectie van de penis induceerde (zie Bujis, 1978; Sofroniew, 1983). In tegenstelling tot de nucleus paraventricularis bleek oxytocine hier echter alleen een erectie van de penis te kunnen induceren bij bilaterale injectie en in hogere doses dan die welke actief bleken in de nucleus paraventricularis (Melis et al., 1986; Chen et al., 1992). Injecties van oxytocine in het subiculum bleken in deze eerdere studies inactief. Recente en zorgvuldigere micro-injectiestudies hebben echter geleid tot de identificatie van een gebied in het ventrale subiculum waarin de injectie van oxytocine een erectie van de penis kon induceren op een dosisafhankelijke manier (Melis et al., 2009b). Het erectiebevorderende effect van oxytocine, geïnjecteerd in dit hersengebied, werd waargenomen bij doses vergelijkbaar met die welke actief bleken te zijn in het ventrale tegmentale gebied na unilaterale injectie (Melis et al., 2007), zoals ook werd gevonden in de paraventriculaire kern. Blijkbaar induceert oxytocine, geïnjecteerd in het ventrale subiculum, een erectie door oxytocinerge receptoren te activeren in neuronen die stikstofmonoxide-synthase bevatten, wat leidt tot een verhoogde productie van stikstofmonoxide. Stikstofmonoxide activeert op zijn beurt, door als intercellulaire boodschapper te fungeren, de neurotransmissie van glutaminezuur, wat leidt tot een erectie van de penis, mogelijk via neurale (glutamaterge) efferente projecties vanuit het ventrale subiculum naar extrahippocampale hersengebieden die de activiteit van mesolimbische dopaminerge neuronen moduleren (bijv. het ventrale tegmentale gebied, de prefrontale cortex, de paraventriculaire kern) (zie hieronder en Melis, 2007, 2009b; Succu et al., 2008).
Dit werkingsmechanisme wordt ondersteund door intra-cerebrale microdialyse-experimenten, die aantonen dat oxytocine geïnjecteerd in het ventrale submiculum in doses die de erectie van de penis induceren, de stikstofoxideproductie en extracellulaire glutaminezuurconcentratie in het dialysaat uit het ventrale submiculum verhoogt (Melis et al. , 2010) en van extracellulair dopamine in de nucleus accumbens (Melis et al., 2007). Deze responsen werden niet alleen geantagoneerd door de oxytocinereceptorantagonist d (CH2) 5Tyr (Me) 2-Orn8-vasotocine, maar ook door de neuronale stikstofmonoxide-synthaseremmer S-methyl-thio-lcitrulline en door de stikstofoxide-scavenger hemoglobine gegeven in het ventrale subiculum enkele minuten vóór oxytocine (Melis et al., 2010).
Bovendien induceert, in lijn met dit werkingsmechanisme, activering van de glutamaterge neurotransmissie door NMDA geïnjecteerd in het ventrale subiculum een erectie van de penis (Melis et al., 2010). Het fenotype van efferente projecties vanuit het ventrale subiculum, die de activering van mesolimbische dopaminerge neuronen en de toename van extracellulaire dopamine in de nucleus accumbens veroorzaken, is momenteel onbekend. Omdat de door oxytocine geïnjecteerde erectie in het ventrale subiculum gepaard gaat met een toename van extracellulair glutaminezuur in het dialysaat uit het ventrale tegmentale gebied, maar niet uit de nucleus accumbens, en wordt geantagoniseerd door (+)MK-801, een krachtige niet-competitieve antagonist van exciterende aminozuurreceptoren van het NMDA-subtype (Woodruff et al., 1987), geïnjecteerd in het ventrale tegmentale gebied, maar niet in de nucleus accumbens (zie figuur 2 en Melis et al., 2009b), is het waarschijnlijk dat deze projecties leiden tot de activering van glutamaterge neurotransmissie in het ventrale tegmentale gebied, wat op zijn beurt mesolimbische dopaminerge neuronen activeert die projecteren naar de nucleus accumbens. Of de verhoogde concentratie glutaminezuur die in het ventrale tegmentale gebied wordt aangetroffen na injectie van oxytocine in het ventrale subiculum afkomstig is van neuronen die hun oorsprong vinden in het subiculum of in andere hersengebieden (bijvoorbeeld de prefrontale cortex), is momenteel onbekend. Niettemin veroorzaakt dit de activering van mesolimbische dopaminerge neuronen en een verhoogde afgifte van dopamine in de nucleus accumbens . Hier leidt de activering van dopaminereceptoren tot de activering van incerto-hypothalamische dopaminerge neuronen, die dopamine vrijgeven in de paraventriculaire kern, waardoor oxytocinerge neuronen die naar het ruggenmerg projecteren worden geactiveerd en de erectie van de penis mediëren (zie boven en Melis et al., 2007, 2009a; Succu et al., 2008).
2.4. De amygdala
De amygdala is een ander hersengebied dat rijk is aan oxytocine vezels en receptoren (zie Freund-Mercier et al., 1987; Vaccari et al., 1998; Uhl-Bronner et al., 2005). Oxytocine wordt hier verondersteld betrokken te zijn bij verschillende functies, van anxiolysis, sociaal geheugen en cognitie, sociaal versterkt leren, emotionele empathie, emotionele gezichtsbehandeling en angst bij mensen tot erectiele functie en seksueel gedrag (zie Kondo et al., 1998; Dominguez et al., 2001; Ebner et al., 2005; Huber et al., 2005; Domes et al., 2007; Petrovic et al., 2008; Lee et al., 2009; Donaldson en Young, 2009; Hurlemann et al. , 2010). Het vermogen van oxytocine om penis-erectie bij mannelijke ratten te induceren wanneer geïnduceerd in de cortexkern van de amygdala posteromediaal werd pas recent ontdekt (Melis et al., 2009b). Deze respons vond gelijktijdig plaats met een toename van de extracellulaire dopamineconcentratie in het dialysaat verkregen uit de schil van de nucleus accumbens, zoals gevonden na oxytocine-injectie in het ventrale submiculum (Melis et al., 2009b). Het mechanisme waardoor oxytocine geïnjecteerd in de corticulaire corticale kern van de amygdala de erectie van de penis induceert, is op dit moment niet bekend. De beschikbare gegevens tonen aan dat zowel de erectie van de penis als de toename van de extracellulaire dopamineconcentratie in het dialysaat verkregen uit de nucleus accumbens worden gemedieerd door de activering van oxytocinerge receptoren, aangezien beide responsen werden afgeschaft door de oxytocinereceptorantagonist d (CH2) 5Tyr ( Me) 2-Orn8-vasotocine geïnjecteerd in de amygdala-kern enkele minuten vóór oxytocine (Melis et al., 2009b).
Ongeacht welk mechanisme oxytocine activeert in de posteromediale corticale kern van de amygdala, de door het peptide geïnduceerde seksuele respons wordt tenietgedaan door de blokkade van alle dopaminerge receptoren met cis-flupenthixol, geïnjecteerd in de schil van de nucleus accumbens, en door de blokkade van NMDA-receptoren met (+)MK-801, geïnjecteerd in het ventrale tegmentale gebied, maar niet in de nucleus accumbens, zoals ook werd vastgesteld voor peniserectie geïnduceerd door oxytocine, geïnjecteerd in het ventrale subiculum (Melis et al., 2009b). Dit suggereert dat oxytocine, geïnjecteerd in de posteromediale kern van de amygdala, de glutaminezuurneurotransmissie in het ventrale tegmentale gebied activeert. Dit veroorzaakt op zijn beurt de activering van mesolimbische dopaminerge neuronen, wat leidt tot peniserectie. Gezien studies die neurale verbindingen aantonen tussen deze kern van de amygdala en het ventrale subiculum (Canteras et al., 1995; French en Totterdell, 2003), doen deze bevindingen de mogelijkheid rijzen dat er een interactie bestaat tussen deze twee hersengebieden, hoewel er ook directe verbindingen zijn beschreven van de amygdala naar de nucleus accumbens of naar het ventrale tegmentale gebied (Kelley en Domesick, 1982; Witter, 2006).
2.5. Het ruggenmerg
Het ruggenmerg is een ander deel van het centrale zenuwstelsel dat oxytocinerge vezels en receptoren bevat (Freund-Mercier et al., 1987; Uhl-Bronner et al., 2005), waarin oxytocine penis erectie induceert (Tang et al., 1998 ; Veronneau-Longueville et al., 1999; Giuliano and Rampin, 2000; Giuliano et al., 2001). Zoals hierboven is vermeld, komen deze oxytocinerge vezels hun oorsprong in de paraventriculaire kern van de hypothalamus en dragen ze bij tot dalende paden die de spinale autonome neuronen reguleren die de erectie van de penis mediëren. Inderdaad maken deze vezels synaptische contacten in de dorsale hoorn preganglionische sympathische en parasympathische celkolommen in de thoraco-lumbale en lumbo-sacrale tractus met spinale neuronen innerlijke penale caverneuze corpora (Marson en McKenna, 1996; Giuliano en Rampin, 2000; Giuliano et al. , 2001). Deze synaptische contacten werden aangetoond door het labelen van spinale neuronen afkomstig uit de penis en het bereiken van het ruggenmerg met specifieke retrograde tracers geïnjecteerd in holle corpora, gecombineerd met dubbele immunofluorescentie en confocale laser-microscopieonderzoeken (Tang et al., 1998; Veronneau-Longueville et al., 1999). In overeenstemming met deze studies, in verdoofde mannelijke ratten, intrathecale injectie van cumulatieve doses oxytocine bij de lumbo-sacrale, maar niet op het thoraco-lumbale niveau, wekte intracaverneuze druk op een dosisafhankelijke manier op. Deze effecten werden opgeheven door de blokkade van de oxytocinerge receptor met d (CH2) 5Tyr (Me) 2-Orn8-vasotocine en door sectie van de bekkenzenuwen (Giuliano en Rampin, 2000; Giuliano et al., 2001). Deze resultaten tonen aan dat oxytocine, werkend op het lumbo-sacrale ruggenmerg, intracaverneuze druk verhoogt, en suggereert dat oxytocine, vrijgemaakt tijdens fysiologische activatie van de paraventriculaire kern, een krachtige activator is van spinale pro-erectiele neuronen die naar de caverneuze corpora projecteren. Interessant is dat deze pro-erectiele spinale neuronen waarop oxytocine werkt om zijn pro-erectiele effect uit te oefenen, ook synaptische contacten ontvangen van serotoninergische neuronen afkomstig uit de nucleus paragigantocellularis van de reticulaire formatie van de medulla oblongata (Marson en McKenna, 1992; Tang et al. ., 1998). Vernietiging van deze serotoninerge neuronen vergemakkelijkt ejaculatie en penisreflexen bij mannelijke ratten (Marson en McKenna, 1992; Yells et al., 1992). Omdat geneesmiddelen die 5HT2C-receptoren stimuleren de erectie van de penis vergemakkelijken wanneer ze intracerebroventriculair worden toegediend, maar niet in de paraventriculaire kern, en geneesmiddelen die 5HT2C-receptoren blokkeren ook dopamine-agonist en door oxytocine geïnduceerde erectie van de penis verminderen, terwijl dopamine-antagonisten 5HT2C-door agonist geïnduceerde erectie van de penis niet verminderen zie Stancampiano et al., 1994 en referenties daarin), is er ook gesuggereerd dat oxytocine de werking van pro-erectiele 5HT2C-receptoren op het niveau van het lumbo-sacrale ruggenmerg vergemakkelijkt (Stancampiano et al., 1994). Als alternatief kan oxytocine de activiteit van spinale afstammende serotoninerge neuronen beïnvloeden door direct in de nucleus paragigantocellularis te werken, waar deze neuronen hun oorsprong vinden (zie Stancampiano et al., 1994). In lijn met deze mogelijkheid is een oxytocinerge route beschreven die begint in de nucleus paraventriculaire en de nucleus paragigantocellularis van de reticulaire formatie in de medulla oblongata bereikt (Bancila et al., 2002). De activering van 5HT2C-receptoren in het ruggenmerg, stroomafwaarts van dopamine- en oxytocine-receptoren, wordt beschouwd als een gemeenschappelijk mechanisme van het pro-erectiele effect van deze verbindingen en zelfs van ACTH-MSH-peptiden (Kimura et al., 2008).
3. Interacties tussen oxytocine, dopamine en glutaminezuur in het centrale zenuwstelsel en erectie van de penis
Zoals in paragraaf 1 is beschreven, vinden alle oxytocinerge neuronen in het centrale zenuwstelsel hun oorsprong in de nucleus paraventricularis en omliggende structuren. De activiteit van deze neuronen staat onder controle van verschillende neurotransmitters en/of neuropeptiden. Tot de meest bestudeerde neurotransmitters op paraventriculair niveau behoren dopamine, glutaminezuur, gamma-aminoboterzuur (GABA), stikstofmonoxide, endocannabinoïden, opioïde peptiden, groeihormoon-vrijmakende peptiden, VGF-gerelateerde peptiden en oxytocine zelf. Dopamine, glutaminezuur, groeihormoonvrijmakende peptiden, VGF-afgeleide peptiden en oxytocine zijn stimulerend; deze stoffen en hun agonisten bevorderen bijvoorbeeld een erectie wanneer ze in de paraventriculaire kern worden geïnjecteerd. GABA, opioïde peptiden en endocannabinoïden daarentegen zijn remmend; deze stoffen of hun agonisten remmen bijvoorbeeld een erectie (zie Meisel en Sachs, 1994; Witt en Insel, 1994; Argiolas en Melis, 1995, 2004, 2005; Giuliano en Rampin, 2000, 2004; McKenna, 2000; Andersson, 2001; Hull et al., 2002).
Verscheidene lijnen van experimenteel bewijs suggereren dat deze oxytocinerge neuronen en de bovengenoemde neurotransmitters en neuropeptiden betrokken zijn bij de controle van erectiele functie en seksueel gedrag in verschillende fysiologische contexten. Bovendien kan oxytocine dat vrijkomt in extra-hypothalamische hersengebieden, zoals het ventrale tegmentale gebied, de hippocampus en zijn regio's, de amygdala en het ruggenmerg de activiteit van die neuronen beïnvloeden waarop oxytocinerge synapsen botsen. Op dit moment zijn de enige neuronen die belangrijk zijn voor erectie van de penis waarop oxytocinerge synapsen botsen, met zekerheid geïdentificeerd, de cellichamen van mesolimbische dopaminerge neuronen van het caudale ventrale tegmentale gebied die naar de schil van de nucleus accumbens projecteren (Melis et al., 2007 ; Succu et al., 2008), en de pro-erectiele spinale neuronen die uitsteken van het lumbo-sacrale kanaal naar de caverneuze corpora (zie Giuliano en Rampin, 2000; Giuliano et al., 2001) (zie ook secties 2.2 en 2.5) . Inderdaad, hoewel oxytocinerge synapsen en receptoren ook zijn geïdentificeerd in het ventrale subiculum, de amygdala en het ruggenmerg, gebieden die allemaal belangrijk zijn voor erectie van de penis (zie hierboven), is in deze gebieden het type neurotransmitter / s aanwezig in de neuronen op welke oxytocinerge zenuwuiteinden botsen, zijn nog onbekend.
Dit deel van de review vat kort de recente literatuur samen over de mechanismen die ten grondslag liggen aan het erectiebevorderende effect van oxytocine, geïnjecteerd in het caudale ventrale tegmentale gebied, het ventrale subiculum van de hippocampus en in het ruggenmerg. Bijzondere aandacht wordt besteed aan de interactie van het peptide met dopamine en glutaminezuur in deze gebieden en aan de rol die deze interactie mogelijk speelt in de centrale controle van de erectiefunctie. Eerst wordt een korte samenvatting gegeven van de effecten van dopamine en glutaminezuur op oxytocinerge neuronen in de nucleus paraventricularis, die ook een belangrijke rol spelen bij de erectiefunctie, om de lezer bewust te maken van de beginfase van het onderzoek op dit gebied, aangezien deze studies al uitgebreid zijn besproken (zie Argiolas en Melis, 1995, 2004, 2005; Melis en Argiolas, 2003). Ook in dit geval wordt bijzondere aandacht besteed aan de meest recente resultaten, die suggereren dat zowel de dopamine-oxytocine-verbinding als de glutaminezuur-oxytocine-verbinding een belangrijke rol spelen, niet alleen bij de seksuele prestaties (erectie en geslachtsgemeenschap), maar ook bij seksuele opwinding en seksuele motivatie.
3.1. Dopamine-oxytocine-interactie in de paraventriculaire kern
Het vermogen van dopamine-agonisten om een erectie te induceren door centrale oxytocinerge neuronen te activeren, werd gesuggereerd direct na de ontdekking dat apomorfine een erectie induceert wanneer het in de paraventriculaire kern wordt geïnjecteerd (Melis et al., 1987). Dit werd bevestigd toen bleek dat de oxytocine-receptorantagonist d(CH2)5Tyr(Me)2-Orn8-vasotocine, geïnjecteerd intracerebroventriculair (icv), de erectie die niet alleen door icv toegediende oxytocine, maar ook door subcutaan toegediende apomorfine werd geïnduceerd, vrijwel volledig kon verminderen (Argiolas et al., 1987b). Deze resultaten werden gevolgd door die van andere studies die vergelijkbare resultaten lieten zien toen d(CH2)5Tyr(Me)2-Orn8-vasotocine intracerebroventriculair werd toegediend en apomorfine rechtstreeks in de paraventriculaire kern werd gegeven (Melis et al., 1989b), wat leidde tot de suggestie dat dopamine-agonisten een erectie van de penis induceren door paraventriculaire oxytocinerge neuronen te activeren die projecteren naar extra-hypothalamische hersengebieden en in het bijzonder naar het ruggenmerg (zie Argiolas en Melis, 1995, 2004, 2005). In lijn met deze hypothese is onlangs bij verdoofde ratten ontdekt dat blokkade van lumbosacrale oxytocinerge receptoren door een niet-peptide oxytocinereceptorantagonist in staat is de door apomorfine geïnduceerde stijgingen van de intracaverneuze druk, veroorzaakt door de dopamine-agonist apomorfine, op te heffen. Dit levert bewijs voor een paraventriculospinale oxytocinerge route die betrokken is bij de erectie van de penis (Baskerville et al., 2009).
Onderzoeken gericht op de identificatie van de dopaminereceptor die verantwoordelijk is voor het opwekken van een erectie, hebben aangetoond dat ook in de nucleus paraventricularis dopaminereceptoragonisten een erectie opwekken door in te werken op dopaminereceptoren van de D2-familie , zoals ook is vastgesteld bij systemisch toegediende dopaminereceptoragonisten (zie Melis et al., 1987; Eaton et al., 1991; Melis en Argiolas, 1995a). Dienovereenkomstig bleek dat apomorfine, een krachtige gemengde D1/D2-receptoragonist, en quinpirole, een krachtige selectieve D2-receptoragonist, maar niet SKF 38393, een selectieve D1-receptoragonist, na injectie in deze hypothalamuskern in staat waren om op dosisafhankelijke wijze een erectie van de penis te induceren. De seksuele respons die door deze D2-receptoragonisten werd opgewekt, werd tenietgedaan door D2-receptorantagonisten, zoals haloperidol en l-sulpiride, maar niet door SCH 23390, een selectieve D1-receptorantagonist (Melis et al., 1987). Het vermogen van apomorfine om een erectie te induceren wanneer het in de nucleus paraventricularis wordt geïnjecteerd, werd ook bevestigd door telemetriestudies. Deze studies toonden aan dat de dopamine-agonist, toegediend in de nucleus paraventricularis, de intracaverneuze druk bij wakkere mannelijke ratten kan verhogen zonder de systemische bloeddruk te beïnvloeden (Chen et al., 1999; Giuliano en Allard, 2001), zoals ook werd waargenomen na systemische injectie (Bernabè et al., 1999). Deze studies bevestigden tevens de belangrijke rol van D2-receptoren, aangezien D1-receptoragonisten doorgaans niet in staat bleken de intracaverneuze druk te verhogen wanneer ze in de nucleus paraventricularis werden geïnjecteerd (Chen et al., 1999).
Er waren vervolgens verschillende experimentele bewijslijnen beschikbaar die suggereerden dat paraventriculaire D2-receptoren, waarvan de stimulatie een erectie van de penis veroorzaakt, zich bevinden op de cellichamen van oxytocinerge neuronen. Ten eerste bevat de paraventriculaire kern dopaminerge zenuwuiteinden die behoren tot de zogenaamde incertohypothalamische dopaminerge neuronen. De cellichamen van deze neuronen bevinden zich in de A13- en A14-groep van Dahlstrom en Fuxe (1964), vertakken zich uitgebreid en innerveren verschillende hypothalamische structuren, waaronder paraventriculaire oxytocinerge neuronen die projecteren naar de neurohypofyse en/of naar extrahypothalamische hersengebieden (Buijs et al., 1984; Lindvall et al., 1984).
De betrokkenheid van deze dopaminergische neuronen op paraventriculair niveau bij de controle van de erectie en de copulatie van de penis wordt ondersteund door microdialyseonderzoeken die aantonen dat de concentraties van extracellulair dopamine en 3,4-dihydroxyfenylazijnzuur (DOPAC), de belangrijkste metaboliet, zijn verhoogd in het dialysaat verkregen uit de paraventriculaire kern van seksueel krachtige mannelijke ratten die niet-contact erecties vertonen wanneer ze worden aangebracht in de aanwezigheid van een ontoegankelijk ovariëctomisch oestrogeen + progesteron-geprepareerd receptief wijfje (Melis et al., 2003).
De toename van de dopamine- en DOPAC-concentraties was zelfs nog groter wanneer copulatie met het ontvankelijke vrouwtje was toegestaan (Melis et al., 2003), zoals ook werd gevonden in het mediale preoptische gebied (Hull et al., 1995) en in de nucleus accumbens (Pfaus en Everitt, 1995). Ten tweede tonen verschillende studies aan dat de erectie van de penis, geïnduceerd door de stimulatie van paraventriculaire D2-receptoren, wordt gemedieerd door oxytocine dat in deze gebieden vrijkomt. Dienovereenkomstig bleek apomorfine, toegediend in doses die een erectie van de penis veroorzaken, de oxytocineconcentratie te verhogen, niet alleen in het plasma van ratten en apen (Melis et al., 1989a; Cameron et al., 1992), maar ook in extra-hypothalamische hersengebieden, zoals de hippocampus (Melis et al., 1990). In lijn met deze resultaten is onlangs aangetoond dat apomorfine, geïnjecteerd in de paraventriculaire kern in een dosis die een erectie van de penis veroorzaakt, ook de extracellulaire dopamineconcentratie in de nucleus accumbens kan verhogen. Dit effect wordt verminderd door de oxytocinereceptorantagonist d(CH2)5Tyr(Me)2-Orn8-vasotocine, geïnjecteerd in het ventrale tegmentale gebied (Succu et al., 2007; Melis et al., 2009a) (zie ook paragraaf 4). Ten derde leiden bilaterale elektrolytische laesies van de nucleus paraventricularis, die oxytocine vrijwel volledig elimineren uit extra-hypothalamische hersengebieden (Hawthorn et al., 1985), tot het opheffen van apomorfine-geïnduceerde erectie (Argiolas et al., 1987a). Selectieve oxytocine-receptorantagonisten, toegediend in de laterale ventrikels maar niet in de nucleus paraventricularis, verminderen dosisafhankelijk de apomorfine-geïnduceerde erectie met een potentie die parallel loopt aan die van deze stoffen bij het blokkeren van oxytocine-receptoren (Melis et al., 1989b). Oxytocine-receptorantagonisten zijn ook zeer effectief in het verminderen van de facilitatie van mannelijk seksueel gedrag, geïnduceerd niet alleen door oxytocine, maar ook door apomorfine (Argiolas et al., 1988, 1989).
Wat betreft het mechanisme waarmee D2-receptoren, geactiveerd door dopamine of door dopamine-receptoragonisten, de activiteit van oxytocinerge neuronen verhogen, waardoor oxytocine vrijkomt in extrahypothalamische hersengebieden en in het ruggenmerg, ondersteunen talrijke experimentele gegevens de hypothese dat de stimulatie van D2-receptoren de concentratie van intracellulaire Ca2+-ionen in de cellichamen van oxytocinerge neuronen verhoogt, wat leidt tot de activering van stikstofmonoxide-synthase, een Ca2+-calmoduline-afhankelijk enzym dat in deze cellichamen aanwezig is (Vincent en Kimura, 1992; Torres et al., 1993; Sanchez et al., 1994; Sato-Suzuki et al., 1998). De verhoogde stikstofmonoxideproductie veroorzaakt op zijn beurt de activering van oxytocinerge neuronen. Dienovereenkomstig werd (1) door apomorfine geïnduceerde peniserectie voorkomen door organische calciumkanaalblokkers en door β-conotoxine GVIA, een krachtige en selectieve blokker van spanningsafhankelijke Ca2+-kanalen van het N-type (McCleskey et al., 1987), toegediend in de nucleus paraventricularis (zie Argiolas et al., 1990, en referenties daarin); (2) door apomorfine geïnduceerde peniserectie werd voorkomen door stikstofmonoxide-synthase-remmers toegediend in de nucleus paraventricularis (Melis et al., 1994c); en (3) apomorfine en andere D2-receptoragonisten, toegediend in doses die een erectie van de penis veroorzaken, verhoogden de stikstofmonoxideproductie in het paraventriculaire dialysaat verkregen door intracerebrale microdialyse. Deze toename werd verminderd door remmers van paraventriculaire stikstofmonoxidesynthase, toegediend in doses die de door D2-receptoragonisten geïnduceerde erectie van de penis verminderen (Melis et al., 1996). Het mechanisme waarmee stikstofmonoxide paraventriculaire oxytocinerge neuronen activeert, is nog steeds onbekend, hoewel beschikbare gegevens suggereren dat stikstofmonoxide als een intracellulaire boodschapper fungeert en dat guanylaatcyclase er niet bij betrokken is. Het actieve fosfodiesteraseresistente analoog van cyclisch GMP, 8-broom-cyclisch GMP, bleek inderdaad geen erectie van de penis te kunnen veroorzaken wanneer het in de paraventriculaire kern werd toegediend (Fig. 2) (zie Melis en Argiolas, 1995b en referenties daarin).
De bovenstaande interpretatie is vaak als niet overtuigend beschouwd, voornamelijk omdat de stimulatie van dopamine D2-receptoren gewoonlijk gekoppeld is aan inhibitie in plaats van excitatie van de cellichamen van de neuronen die deze receptoren bevatten, via verschillende G-proteïne-gekoppelde mechanismen (zie Sokoloff en Schwartz, 1995). Een mogelijke verklaring voor deze discrepantie, die in lijn is met een directe stimulatie van paraventriculaire oxytocinerge neuronen door dopamine, is echter recentelijk geopperd door de ontdekking van een G-proteïne-gekoppelde dopamine D4- receptor, een lid van de D2-receptorfamilie (D2, D3 en D4), waarvan de stimulatie de Ca2+-instroom verhoogt in celpreparaten die een gekloonde versie van dit receptortype bevatten (Moreland et al., 2004). Belangrijker nog, een selectieve D4-receptoragonist (bijv. ABT 724) (N-methyl-4-(2-cyanophenyl)piperazynil-3-methylbenzamide maleaat) bleek in staat om een erectie bij mannelijke ratten te induceren wanneer deze systemisch werd toegediend (Brioni et al., 2004). Dit effect werd niet waargenomen bij de selectieve D2-receptorsubtype-agonist PNU-95666E (R-5,6-dihydro-N,N-dimethyl-4Himidazo[4,5,1-i]chinolin-5-amine) (Hsieh et al., 2004), die evenmin in staat was om de Ca2+-instroom te verhogen in de celpreparaten die de gekloonde versie van het D4-receptorsubtype bevatten (Brioni et al., 2004; Moreland et al., 2004). In overeenstemming met de bovenstaande hypothese en bevindingen bleken PD 168,077 (N-methyl-4-(2-cyanophenyl)piperazynil-3-methylbenzamide maleaat), PIP-3EA (2-[4-(2-methoxyphenyl)piperazin-1-ylmethyl]imidazo[1,2-a]pyridine) en andere selectieve D4-receptoragonisten (Heier et al., 1997; Melis et al., 2006b; Löber et al., 2009) in staat te zijn een erectie te induceren bij systemische, intracerebrale en intraventriculaire injectie, zij het minder effectief dan apomorfine. Het erectiebevorderende effect van deze D4-receptoragonisten werd voorkomen door L-745,870 (3-(4-[chlorophenyl]piperazin-1-yl)-methyl-1H-pyrrolo[2,3-B]pyridine trihydrochloride), een selectieve D4-receptorantagonist (Patel et al., 1997; Melis et al., 2005, 2006b; Löber et al., 2009).
Ten slotte werd het pro-erectiele effect van de bovengenoemde D4-receptoragonisten ook verminderd door stikstofoxide-synthase-remmers, toegediend in de paraventriculaire kern, en door d (CH2) 5Tyr (Me) 2-Orn8-vasotocine, een selectieve oxytocine-receptorantagonist gegeven icv maar niet in de paraventriculaire kern. Deze resultaten komen overeen met de hypothese dat D4-receptoragonisten ook oxytocinerge neuronen stimuleren door stikstofoxide-synthase te activeren en oxytocine in extrahypothalamische hersengebieden vrij te maken, wat op zijn beurt penis-erectie vergemakkelijkt, zoals aangetoond voor apomorfine en klassieke D2-agonisten (Melis et al. ., 2005, 2006b; Löber et al., 2009).
De bovenstaande bevindingen ondersteunen ook de hypothese dat dopamine een erectie van de penis induceert door in te werken op D4-receptoren in de cellichamen van paraventriculaire oxytocinerge neuronen. Deze receptoren veroorzaken een verhoogde Ca2+-instroom in de cellichamen van de oxytocinerge neuronen, wat leidt tot een verhoogde stikstofmonoxideproductie. Stikstofmonoxide activeert op zijn beurt de oxytocinerge neuronen om oxytocine vrij te geven in extrahypothalamische hersengebieden en in het ruggenmerg, zoals reeds besproken. In dit verband is het opmerkelijk dat dopaminereceptoren in de cellichamen van oxytocinerge neuronen in de paraventriculaire kern pas recent zijn geïdentificeerd door middel van dubbele immunofluorescentie-onderzoeken met zeer selectieve D2-, D3- en D4-receptorantilichamen en met oxytocine-antilichamen. Uit deze onderzoeken is gebleken dat alle drie de D2-receptor-subtypen (D2, D3 en D4) tot expressie komen en afzonderlijk co-lokaliseren in de cellichamen van oxytocinerge neuronen in de nucleus paraventricularis (en ook in de nucleus supraopticus en het mediale preoptische gebied) (Baskerville en Douglas, 2008; Baskerville et al., 2009).
Dit biedt sterke neuroanatomische ondersteuning voor de mogelijkheid dat dopamine en dopaminereceptoragonisten van het D2-type een erectie van de penis induceren door rechtstreeks oxytocinerge neuronen te activeren die projecteren naar de hierboven genoemde extrahypothalamische hersengebieden , zoals het ruggenmerg, het ventrale tegmentale gebied, de hippocampus en de amygdala. Deze bevindingen bieden echter geen hulp bij de identificatie van het/de D2-receptorsubtype(n) waarvan de stimulatie de erectiereactie veroorzaakt. Helaas kan zelfs onderzoek gericht op het identificeren van oxytocinerge neuronen die geactiveerd worden door dopaminereceptoragonisten in de nucleus paraventricularis geen uitkomst bieden. Ondanks de verschillende activiteit op de diverse dopaminereceptor-subtypen, veroorzaken zowel gemengde dopaminereceptor-agonisten (bijv. apomorfine), selectieve D2-receptor-agonisten (bijv. quinerolane, dat op alle D2-receptor-subtypen werkt) als selectieve D4-receptor-agonisten de activering van oxytocinerge neuronen, zoals gemeten aan de hand van de toename van FOS-eiwit in parvocellulaire oxytocinerge neuronen van de nucleus paraventricularis (Bitner et al., 2006). Deze bevinding is echter recentelijk in twijfel getrokken, aangezien de toename van FOS-eiwit in paraventriculaire oxytocinerge neuronen alleen werd waargenomen wanneer een erectie werd opgewekt door quinerolane, dat voornamelijk op D2- en D3-receptor-subtypen werkt, maar niet door PD 168077, een D4-receptor-agonist, ondanks het vermogen van beide stoffen om de seksuele respons op te wekken (Baskerville et al., 2009).
Verdere experimenten met selectieve agonisten van de andere D2-receptorsubtypen (hoofdzakelijk D2 en D3) zijn dan nodig om de exacte rol van elk dopaminereceptorsubtype bij de beheersing van de erectiele functie op het paraventriculaire niveau te identificeren. In dit opzicht is apomorfine, dat krachtig werkt op alle dopaminereceptorsubtypen (zie Brioni et al., 2004 en referenties daarin), zoals reeds eerder is opgemerkt, veel effectiever dan D4-receptorenagonisten bij het induceren van penis-erectie wanneer het in de paraventriculaire injectie wordt geïnjecteerd. kern. Dit kan worden verklaard door een hogere affiniteit van apomorfine op D4-receptoren in vergelijking met die van de geteste D4-receptoragonisten, of als alternatief kunnen D4-receptoragonisten optreden als partiële agonisten van de D4-receptor, of de gelijktijdige activering van verschillende dopaminereceptor-subtypen door apomorfine kan een hogere activering van oxytocinerge neuronen veroorzaken die de erectie van de penis mediëren, dan de activering door alleen D2-receptoragonisten van het D4-receptorsubtype.
Interacties tussen dopamine D1- en D2-receptoren zijn al beschreven in de controle van seksueel gedrag op het niveau van het mediale preoptische gebied (zie Hull et al., 1989). Indien het onvermogen van selectieve D2-receptoragonisten om een erectie te induceren (Hsieh et al., 2004) wordt bevestigd (maar zie Depoortère et al., 2009), bijvoorbeeld zelfs na injectie van deze stoffen in de paraventriculaire kern, dient de belangrijke rol van D3-receptoren, al dan niet in combinatie met D4-receptoren, bij de activering van oxytocinerge neuronen die de erectie mediëren, nader te worden onderzocht (zie Baskerville et al., 2009). Helaas zijn er momenteel geen selectieve D2- en D3-receptoragonisten beschikbaar (bijvoorbeeld stoffen die in vitro minstens vier/vijf ordes van grootte verschillen in hun affiniteit voor deze twee receptortypes). Om deze reden moet de recente suggestie dat D3-receptoren de door klassieke D2-receptoragonisten geïnduceerde peniserectie mediëren, die voornamelijk gebaseerd is op het vermogen van vermeende D3-receptorantagonisten, gekarakteriseerd in in vitro-experimenten, om de door klassieke D2-agonisten, zoals apomorfine, quinpirole en pramipexol, geïnduceerde peniserectie te verminderen – stoffen die alle dopamine D2-receptorsubtypen krachtig activeren (Collins et al., 2009) – zeker worden gevalideerd met andere experimenten. Deze validatie is ook nodig omdat in deze studie geen effect van D4-receptoragonisten op de peniserectie werd gevonden, in schril contrast met de resultaten van de bovengenoemde studies, die een pro-erectiel effect van D4-receptoragonisten aantonen. Het vermogen van apomorfine om een erectie (en geeuwen) te induceren bij D4-receptor-knockoutmuizen met een potentie die identiek is aan die bij wildtype D4-receptor-knockoutmuizen, en het vermogen van D3-receptorantagonisten om de apomorfine-respons bij deze dieren te onderdrukken (Collins et al., 2009), kan niet worden beschouwd als definitief bewijs voor een selectieve rol van het D3-receptorsubtype bij door D2-receptoragonisten geïnduceerde erectie. Afgezien van soortverschillen hebben studies met ablatie van neurotransmitter-/neuropeptide- en/of neurotransmitter-/neuropeptidereceptorgenen (neurotransmitter-/neuropeptide- en/of neurotransmitter-/neuropeptidereceptor-knockoutdieren) doorgaans geleid tot verdere verwarring en complicaties bij de bevestiging van de veronderstelde seksuele rol van neurotransmitters en/of neuropeptiden en hun receptoren. Zo leidt ablatie van het oxytocinegen tot oxytocine-knockoutmuizen die normaal paren en copuleren, alsof oxytocine niet nodig is voor paring en copulatie. Ook de homozygote vrouwelijke oxytocine-knockoutmuizen vertonen normale paring en bevalling, hoewel met een duidelijke verstoring van de melkafgifte (Nishimori et al., 1996; Young et al., 1996). De ablatie van het gen dat codeert voor neuronale stikstofmonoxide-synthase produceert eveneens stikstofmonoxide-synthase-knockoutmuizen die normaal paren en copuleren (Huang et al., 1993). Dit gebeurt ondanks het feit dat stikstofmonoxide-synthase stikstofmonoxide produceert, een van de belangrijkste fysiologische mediatoren van peniserectie op penisniveau (Burnett et al., 1992; Rajfer et al., 1992) en op centraal niveau, in de paraventriculaire kern van de hypothalamus (Argiolas, 1994; Benelli et al., 1995; Melis et al., 1998). Deze bevindingen wijzen echter waarschijnlijk op een belangrijk kenmerk van de voortplantingsfysiologie, namelijk de redundantie van de systemen die betrokken zijn bij de regulatie ervan op centraal en perifeer niveau.
Een dergelijke redundantie heeft zeker een evolutionaire oorsprong, aangezien het de overdracht van genen naar de volgende generatie garandeert voor het voortbestaan van de soort. Het feit dat ablatie van het D4-receptorgen het erectiebevorderende effect van apomorfine niet verandert, suggereert daarom dat D4-receptoren, net als oxytocine en stikstofmonoxide, slechts enkele van de mediatoren zijn die werkzaam zijn in de systemen die de erectiefunctie reguleren, in plaats van te suggereren dat deze receptoren geen rol spelen bij de controle van peniserectie en seksueel gedrag. Het falen van D4-agonisten om peniserectie te induceren wanneer ze systemisch worden toegediend aan mannelijke ratten van verschillende stammen is recentelijk gerapporteerd in een andere studie (Depoortère et al., 2009). In tegenstelling tot het werk van Collins et al. (2009), en om het beeld van de rol van de verschillende D2-receptorsubtypen bij de controle van de peniserectie nog raadselachtiger te maken, laat deze studie ook zien dat vermeende selectieve D3-receptorantagonisten die systemisch werden toegediend, niet in staat waren om de door apomorfine geïnduceerde peniserectie te verminderen bij mannelijke ratten van het ras dat gevoeliger was voor het erectiebevorderende effect van apomorfine, terwijl de seksuele respons (en geeuwen) werd geantagoniseerd door de selectieve D2-antagonist L-741,626 (3-[[4-(4-chlorophenyl)-4-hydroxypiperidin-1-yl]methyl-1H-indole). Dit leidde de auteurs ertoe te suggereren dat D2-receptoren, in plaats van D3- en D4-receptoren, een belangrijke rol spelen bij de door D2-agonisten geïnduceerde peniserectie (Depoortère et al., 2009). Tot slot kan de mogelijkheid dat het stimulerende effect van dopamine-receptoragonisten op oxytocinerge neuronen die de erectie van de penis bewerkstelligen, althans gedeeltelijk, indirect in plaats van direct is, bijvoorbeeld gemedieerd of beïnvloed door veranderingen in de activiteit van andere neurotransmitters of neuropeptiden die de activiteit van oxytocinerge neuronen in de paraventriculaire kern kunnen moduleren, niet volledig worden uitgesloten.
3.2. Interactie van glutaminezuur-oxytocine in de paraventriculaire kern
De paraventriculaire kern van de hypothalamus is zeer rijk aan synapsen die een exciterend aminozuur als neurotransmitter bevatten (bijvoorbeeld glutaminezuur en asparaginezuur ) (Van Den Pol, 1991). Exciterende aminozuren in deze kern zijn betrokken bij talrijke functies, waaronder peniserectie en seksueel gedrag (Roeling et al., 1991; Melis et al., 1994b, 2000, 2004b). Dienovereenkomstig bleek N-methyl-d-asparaginezuur (NMDA), een selectieve agonist van het NMDA-receptorsubtype, maar niet (±)-_-amino-3-hydroxy-5-methyl-isoxazol-4-propionzuur (AMPA), een selectieve agonist van het AMPA-receptorsubtype, of (±)-trans(1)-amino-1,3-cyclopentaandicarboxiliczuur (ACPD), een selectieve agonist van het metabotrope receptorsubtype, in staat te zijn een erectie van de penis te induceren wanneer het werd geïnjecteerd in de paraventriculaire kern van vrij bewegende ratten (Melis et al., 1994b). Het erectiebevorderende effect van 948 MR Melis, A. Argiolas / Neuroscience and Biobehavioral Reviews 35 (2011) 939-955 NMDA werd voorkomen door (+)MK-801, een niet-competitieve NMDA-receptorantagonist (Woodruff et al., 1987), geïnjecteerd in de paraventriculaire kern (Melis et al., 1994b). In lijn met deze resultaten bleek NMDA in telemetriestudies gericht op het monitoren van de intracaverneuze druk veel actiever te zijn dan agonisten van de andere exciterende aminozuurreceptor-subtypen wanneer het in de paraventriculaire kern werd geïnjecteerd, wat leidde tot een verhoging van de intracaverneuze druk bij wakkere of verdoofde mannelijke ratten (Zahran et al., 2000; Chen en Chang, 2003).
Zoals hierboven gesuggereerd voor oxytocine en dopamine, is het waarschijnlijk dat NMDA-receptoren die de peniserectie mediëren zich in de cellichamen van oxytocinerge neuronen bevinden, aangezien exciterende aminozuurzenuwuiteinden inwerken op oxytocinerge cellichamen in de nucleus paraventricularis (Van Den Pol, 1991). In analogie met wat is gevonden bij dopamine-receptoragonisten, wordt het erectiebevorderende effect van NMDA blijkbaar gemedieerd door de activering van oxytocinerge neurotransmissie, en wordt het opgeheven door de oxytocine-antagonist d(CH2)5Tyr(Me)2-Orn8-vasotocine, toegediend intracerebroventriculair, maar niet in de nucleus paraventricularis (zie Argiolas en Melis, 1995, 2004, 2005 en de daarin genoemde referenties). Evenzo is de door NMDA geïnduceerde activering van de oxytocinerge neurotransmissie ook secundair aan de activering van stikstofmonoxide-synthase, aangezien door NMDA geïnduceerde peniserectie wordt voorkomen door stikstofmonoxide-synthase-remmers (N-nitro-N-methyl-argininemethylester en N-methylthio-citrulline) die in de nucleus paraventricularis worden toegediend, en NMDA dat in de nucleus paraventricularis wordt geïnjecteerd in doses die peniserectie veroorzaken, de stikstofmonoxideproductie in de nucleus hypothalamus verhoogt (zie Argiolas en Melis, 1995, 2004, 2005 en de daarin genoemde referenties). Wat betreft dopamine-receptoragonisten kan de door NMDA geïnduceerde activering van stikstofmonoxidesynthase ook secundair zijn aan een verhoogde Ca2+-instroom in oxytocinerge celkernen via de Ca2+-kanaal-gekoppelde NMDA-receptoren, zoals aangetoond in verschillende neurale preparaten (voor een overzicht zie Snyder, 1992; Southam en Garthwaite, 1993; Schuman en Madison, 1994 en de daarin genoemde referenties). Stikstofmonoxide activeert op zijn beurt de oxytocinerge neurotransmissie (zie hierboven). De oorsprong van glutamaterge projecties die paraventriculaire oxytocinerge neuronen activeren die de peniserectie mediëren, is onbekend, hoewel sommige neuroanatomische en elektrofysiologische aanwijzingen suggereren dat ze, althans gedeeltelijk, in de hippocampus kunnen ontstaan (Saphier en Feldman, 1987; Chen et al., 1992). Hoewel verder onderzoek nodig is om de oorsprong van de glutamaterge projecties naar de nucleus paraventricularis beter te karakteriseren, wordt de betrokkenheid van glutaminezuur in de nucleus paraventricularis bij de controle van peniserectie en seksueel gedrag duidelijk ondersteund door microdialyseonderzoek. Zo bleken de extracellulaire concentraties van glutaminezuur en asparaginezuur verhoogd te zijn in het dialysaat verkregen uit de nucleus paraventricularis van mannelijke ratten die een erectie zonder direct contact vertoonden wanneer ze werden blootgesteld aan ontoegankelijke, met oestrogeen en progesteron geprimeerde, ontvankelijke vrouwelijke ratten (Melis et al., 2004b). Deze peniserecties worden ook gemedieerd door de activering van centrale oxytocinerge transmissie (Melis et al., 1999a,b). Deze verhogingen waren zelfs nog groter wanneer copulatie met de ontvankelijke vrouwelijke rat was toegestaan (Melis et al., 2004a). In overeenstemming met de hypothese dat er een verhoogde activiteit van exciterende aminozuren optreedt in de nucleus paraventricularis tijdens peniserectie en copulatie, worden zowel erecties zonder fysiek contact als copulatiegedrag (waarbij peniserecties optreden tijdens de copulatie) verminderd door blokkering van NMDA-receptoren in de nucleus paraventricularis. Deze vermindering wordt gevolgd door een afname van de toename van de stikstofmonoxideproductie die in deze hypothalamuskern optreedt in deze fysiologische contexten (Melis et al., 2000). Een toename van de extracellulaire glutaminezuurconcentratie als gevolg van een verminderde GABA-afgifte door GABA-erge zenuwuiteinden die inwerken op exciterende aminozuur-erge synapsen naast oxytocinerge celkernen, werd ook gevonden in de nucleus paraventricularis na blokkering van cannabinoïde CB1-receptoren door de CB1-antagonist SR 141761A, toegediend in de laterale ventrikels of rechtstreeks in de nucleus paraventricularis in doses die een erectie van de penis veroorzaken (zie Succu et al., 2006; Castelli et al., 2007). Deze toename leidde tot activering van stikstofmonoxide-synthase in de celkernen van oxytocinerge neuronen, waardoor de stikstofmonoxideproductie toenam. Stikstofmonoxide activeert op zijn beurt oxytocinerge neuronen die de erectie van de penis mediëren, zoals hierboven beschreven. In overeenstemming met dit mechanisme werd de door SR 141761A geïnduceerde peniserectie verminderd door de blokkade van NMDA-receptoren en door stikstofmonoxide-synthase-remmers, maar niet door de blokkade van dopamine- of oxytocinereceptoren in de paraventriculaire kern, terwijl deze werd voorkomen door de blokkade van centrale oxytocinereceptoren door oxytocinereceptorantagonisten die intracerebroventriculair werden toegediend (Melis et al., 2004a, 2006a).
3.3. Oxytocine-dopamine-interactie in het ventrale tegmentale gebied
Oxytocine induceert peniserectie wanneer het dosisafhankelijk wordt geïnjecteerd in het caudale deel van het ventrale tegmentale gebied(Melis et al., 2007). De laagste actieve dosis die unilateraal werd geïnjecteerd, was 20 ng, terwijl de hoogste geteste dosis 100 ng was. Het oxytocine-effect wordt gemedieerd door de activering van oxytocinerge receptoren, omdat de seksuele respons wordt opgeheven door de eerdere injectie van de oxytocine-antagonist d (CH2) 5Tyr (Me) 2-Orn8-vasotocine in het caudale ventraal tegmentale gebied. Deze receptoren zijn gelokaliseerd in de cellichamen van dopaminergische neuronen, die voornamelijk naar de schil van de nucleus accumbens projecteren. Dienovereenkomstig tonen (1) dubbele immunofluorescentie-onderzoeken aan dat oxytocinerge vezels in het caudale ventrale tegmentale gebied in nauw contact staan met de cellichamen van dopaminerge neuronen, waarvan het merendeel positief werd gemerkt voor tyrosine-hydroxylase en de retrograde tracer Fluorogold eerder bevatte. geïnjecteerd in de schil van de nucleus accumbens (Melis et al., 2007), en (2) ventraal tegmentaal gebied oxytocine-geïnduceerde erectie van de penis komt gelijktijdig voor met een toename van de concentratie van extracellulaire dopamine in het dialysaat verkregen uit de schaal van de nucleus accumbens (Melis et al., 2007). Oxytocine-geïnduceerde erectie van de penis komt ook gelijktijdig voor met een toename van de productie van stikstofmonoxide in het ventrale tegmentale gebied, waarbij beide responsen niet alleen door d (CH2) 5Tyr (Me) 2-Orn8-vasotocine en door de stikstofoxidesynthaseremmer S- antagoneren. methyl-thio-l-citrulline, maar ook door _-conotoxine, een spanningsafhankelijke Ca2 + -kanaalblokker en door ODQ (1H- [1,2,4] oxadiazool [4,3-a] quinoxalin-1-one), een krachtige remmer van guanylaat cyclase, alle gegeven in het caudale ventrale tegmentale gebied vóór oxytocine (Succu et al., 2008). Aangezien veel van de Fluorogold-gelabelde dopaminerge cellichamen die in contact komen met oxytocinerge vezels, positief bevonden voor tyrosinehydroxylase in het caudale ventrale tegmentale gebied, werden ze ook positief gemerkt voor stikstofoxidesynthase en guanylaatcyclase (Succu et al., 2008), oxytocine geïnduceerde erectie van de penis kan worden gemedieerd door het volgende mechanisme. De activering van oxytocinerge receptoren in dopaminerge cellichamen door het peptide verhoogt Ca2 + influx binnen de cellichamen van dopaminerge neuronen. Dit activeert stikstofoxide-synthase, een Ca2 + -calmoduline-afhankelijk enzym, waardoor de stikstofoxideproductie wordt verhoogd. Stikstofoxide activeert op zijn beurt guanylaatcyclase, wat leidt tot een verhoogde concentratie van cyclisch GMP. Cyclisch GMP activeert dopaminerge neuronen die naar de nucleus accumbens projecteren. De rol van cyclisch GMP bij erectie van de penis geïnduceerd door oxytocine geïnjecteerd in het caudale ventrale tegmentale gebied wordt ook ondersteund door het vermogen van 8-broom-cyclische GMP, een actieve fosfodiësteraseresistente analoog van cyclisch GMP, om penis erectie te induceren wanneer geïnjecteerd in de caudaal ventraal tegmentaal gebied en om extracellulaire dopamine in het dialysaat uit de nucleus accumbens te verhogen (Succu et al., 2008; Melis et al., 2009a). Dit is in strijd met het mechanisme waarmee stikstofmonoxide oxytocinerge neuronen in de paraventriculaire kern activeert, zijnde 8-broom-cyclisch GMP dat niet in staat is penis-erectie te induceren wanneer het in deze kern wordt geïnjecteerd (Melis en Argiolas, 1995b) (Fig. 2). De rol van dopamine dat vrijkomt in de nucleus accumbens bij erectie van de penis, geïnduceerd door oxytocine geïnjecteerd in het caudale ventrale tegmentale gebied, wordt ondersteund door het vermogen van haloperidol, een krachtige dopamine-receptorantagonist die in de nucleus accumbens wordt geïnjecteerd, om de oxytocinerespons te verminderen (Melis et al., 2007).Wat betreft de neurale paden geactiveerd door dopamine in de nucleus accumbens die leiden tot de erectie van de penis, deze zijn nog onbekend. De beschikbare gegevens suggereren echter dat deze routes dopamine-neurotransmissie in de paraventriculaire kern van de hypothalamus activeren. Dienovereenkomstig vindt door oxytocine geïnduceerde erectie van de penis gelijktijdig plaats met een toename van extracellulaire dopamine, niet alleen in de nucleus accumbens, maar ook in de paraventriculaire kern en wordt geantagoniseerd door de dopamine-receptorantagonist haloperidol die in de paraventriculaire kern is geïnjecteerd (Melis et al., 2007). EENSamen ondersteunen deze resultaten het idee dat oxytocinerge neuronen afkomstig uit de paraventriculaire kern en naar het caudale ventraal tegmentale gebied projecteren, indien geactiveerd, oxytocine in dit gebied vrijgeven, waardoor een NO-cyclisch GMP-signaleringssysteem wordt geactiveerd, die op zijn beurt mesolimbische dopaminerge neuronen activeert (Melis et al., 2007, 2009a; Succu et al., 2008). Dopamine dat vrijkomt in de nucleus accumbens activeert op zijn beurt neurale paden die leiden tot de activering van incortoon-hypothalamische dopaminerge neuronen, die paraventriculaire oxytocinerge neuronen stimuleren die naar het ruggenmerg leiden en de erectie van de penis mediëren. Tegelijkertijd kan dopamine die vrijkomt in de paraventriculaire kern ook oxytocinerge neuronen activeren die naar extra-hypothalamische hersengebieden zoals het ventrale tegmentale gebied, de hippocampus, de amygdala en misschien andere hersengebieden projecteren.
Zoals hierboven vermeld, verhoogt apomorfine, geïnjecteerd in de paraventriculaire kern in een dosis die een erectie van de penis induceert, in lijn met deze hypothese ook de extracellulaire dopamineconcentratie in de nucleus accumbens. Dit effect wordt verminderd door de oxytocinereceptorantagonist d(CH2)5Tyr(Me)2-Orn8-vasotocine, geïnjecteerd in het ventrale tegmentale gebied (Succu et al., 2007; Melis et al., 2009a). Samen zouden de bovengenoemde neurale paden een hypothetisch neuraal circuit kunnen vormen, waarbij dopamine, oxytocine en andere neurotransmitters (bijv. glutaminezuur, zie hieronder) betrokken zijn en dat niet alleen de seksuele prestaties beïnvloedt, maar ook de seksuele motivatie en de seksuele beloning (zie paragraaf 4).
3.4. Oxytocine-glutaminezuurinteractie in het ventrale subiculum van de hippocampus
Oxytocine induceert de erectie van de penis bij injectie in de ventrale, maar niet in het dorsale subiculum, op een dosisafhankelijke manier (Melis et al., 2009b). De seksuele respons wordt gemedieerd door de stimulatie van oxytocine-receptoren, die wordt afgeschaft door de eerdere injectie van d (CH2) 5Tyr (Me) 2-Orn8-vasotocine op dezelfde plaats van oxytocine, zoals te vinden in andere hersengebieden (zie hierboven) . Wat de lokalisatie van deze receptoren betreft, suggereren de beschikbare gegevens dat ze gelokaliseerd zijn in de cellichamen van neuronen rijk aan stikstofoxide-synthase.
Microdialyseonderzoek toont aan dat door oxytocine geïnduceerde peniserectie gepaard gaat met een toename van de stikstofmonoxideproductie in het ventrale subiculum, en dat deze toename niet alleen wordt opgeheven door de voorafgaande injectie van de stikstofmonoxidesynthaseremmer S-methyl-thio-l-citrulline en door de stikstofmonoxidevanger hemoglobine, maar ook door d(CH2)5Tyr(Me)2-Orn8-vasotocine, die alle op dezelfde plaats als oxytocine worden toegediend in doses die peniserectie antagoniseren (Melis et al., 2010). Belangrijker nog is dat oxytocine-geïnduceerde peniserectie ook gepaard gaat met een toename van de concentratie extracellulair glutaminezuur in het ventrale subiculum, wat slechts gedeeltelijk wordt geantagoniseerd door de niet-competitieve NMDA-receptorantagonist (+)MK-801 die in het ventrale subiculum wordt toegediend (Melis et al., 2010). Samen suggereren deze resultaten dat nieuw gevormd stikstofmonoxide, door te fungeren als intercellulaire boodschapper, de glutaminezuurneurotransmissie activeert die leidt tot peniserectie, mogelijk via neurale efferente projecties van het ventrale subiculum naar extrahippocampale hersengebieden. In lijn met deze hypothese induceert NMDA, geïnjecteerd in het ventrale subiculum, een erectie van de penis op een dosisafhankelijke manier. Dit effect wordt volledig geantagoniseerd door een voorafgaande injectie van (+)MK-801 op dezelfde locatie, maar niet door S-methyl-thio-l-citrulline, hemoglobine of d(CH2)5Tyr(Me)2-Orn8-vasotocine (Melis et al., 2010). Wat betreft de neurale efferente banen die projecteren naar extrahippocampale hersengebieden die worden geactiveerd door exciterende aminozuren (d.w.z. glutaminezuur) in het ventrale subiculum, is het waarschijnlijk dat deze glutamatergisch zijn, net als de meeste efferente projecties vanuit de hippocampus. Op dit moment kan alleen worden gesuggereerd dat deze projecties de activiteit van mesolimbische dopaminerge neuronen moduleren, die op hun beurt de activiteit van incerto-hypothalamische dopaminerge neuronen in de paraventriculaire kern moduleren, wat leidt tot de activering van oxytocinerge neuronen die de erectie van de penis mediëren, zoals reeds besproken (zie hierboven).
Dienovereenkomstig treedt peniserectie, geïnduceerd door oxytocine in het ventrale subiculum, gelijktijdig op met een toename van de concentratie extracellulaire dopamine in de schil van de nucleus accumbens, en deze toename wordt, net als peniserectie, tenietgedaan door d(CH2)5Tyr(Me)2-Orn8-vasotocine dat in het ventrale subiculum wordt toegediend vóór de oxytocine (Melis et al., 2009b). Bovendien, aangezien de door oxytocine geïnduceerde peniserectie in het ventrale subiculum ook wordt verminderd door (+)MK-801 dat in het ventrale tegmentale gebied wordt geïnjecteerd, maar niet in de nucleus accumbens (Melis et al., 2009b), en dit gelijktijdig optreedt met een toename van extracellulair glutaminezuur in het ventrale tegmentale gebied, maar niet in de nucleus accumbens, en beide reacties worden opgeheven door d(CH2)5Tyr(Me)-Orn8-vasotocine, dat vóór de oxytocine in het ventrale subiculum wordt geïnjecteerd (zie figuur 3), is het waarschijnlijk dat de activering van mesolimbische dopaminerge neuronen secundair is aan een verhoogde glutamaterge neurotransmissie in het ventrale tegmentale gebied. Dit suggereert dat er een interactie tussen glutaminezuur en dopamine bestaat die de peniserectie in het ventrale tegmentale gebied reguleert. Verder onderzoek is nodig om vast te stellen of de pro-erectiele efferente glutameterge banen van het subiculum naar het ventrale tegmentale gebied direct of indirect zijn, dat wil zeggen via de prefrontale cortex of andere hersengebieden (zie Melis et al., 2009b en de daarin genoemde referenties). Aangezien de paraventriculaire kern ook glutamaterge projecties ontvangt van de hippocampus (zie boven en Saphier en Feldman, 1987), en glutaminezuur paraventriculaire oxytocinerge neuronen activeert, waaronder die welke projecteren naar het ventrale tegmentale gebied (zie Argiolas en Melis, 2005 en referenties daarin), en oxytocine in het ventrale tegmentale gebied een erectie van de penis induceert en de activiteit van mesolimbische dopaminerge neuronen verhoogt (zie boven), ligt het voor de hand te veronderstellen dat paraventriculaire oxytocinerge neuronen mogelijk ook, althans gedeeltelijk, betrokken zijn bij de activering van mesolimbische dopaminerge neuronen door oxytocine dat in het ventrale subiculum wordt geïnjecteerd (zie paragraaf 4).
4. Slotopmerkingen
De hierboven besproken onderzoeken bevestigen en breiden eerdere bevindingen uit die aantonen dat oxytocine bij mannelijke ratten een sleutelrol speelt in de centrale controle van de peniserectie op het niveau van de paraventriculaire kern van de hypothalamus en het ruggenmerg. Met name de meest recente studies tonen aan dat oxytocine de peniserectie ook beïnvloedt door in te werken op andere hersengebieden, namelijk het ventrale tegmentale gebied, het ventrale subiculum en de posteromediale corticale kern van de amygdala.
Op paraventriculair niveau is de belangrijkste nieuwe bevinding wellicht de ontdekking van de expressie van alle dopaminereceptoren van de D2-familie (D2, D3 en D4) in de cellichamen van oxytocinerge neuronen in de nucleus paraventricularis (en in de nucleus supraopticus en het mediale preoptische gebied) (Baskerville en Douglas, 2008; Baskerville et al., 2009). Dit biedt sterke neuroanatomische ondersteuning voor de hypothese dat dopamine en dopaminereceptoragonisten rechtstreeks oxytocinerge neuronen kunnen activeren die betrokken zijn bij de erectiefunctie en die niet alleen projecteren naar het ruggenmerg, maar ook naar extra-hypothalamische hersengebieden . In dit verband is ook de ontdekking belangrijk dat de door dopaminereceptoragonisten geïnduceerde toename van de intracaverneuze druk wordt verminderd door de blokkade van oxytocinerge receptoren in het lumbosacrale ruggenmerg (Baskerville et al., 2009). Hoewel dergelijk bewijs is verkregen bij verdoofde mannelijke ratten, bevestigt de bevinding de activering van een paraventriculo-spinale oxytocinerge dalende baan die betrokken is bij door dopamine-receptoragonisten geïnduceerde peniserectie. Het moet echter nog worden vastgesteld of de door stimulatie van dopaminereceptoren in oxytocinerge celkernen geïnduceerde erectie het gevolg is van de activering van een specifiek dopaminereceptor-subtype van de D2-familie (D2, D3 of D4), of dat deze receptor-subtypen samenwerken bij het moduleren van de erectierespons, mogelijk op verschillende manieren afhankelijk van de context waarin de erectie optreedt (zie Moreland et al., 2004; Enguehard-Gueiffier et al., 2006; Melis et al., 2006a,b; Löber et al., 2009; Collins et al., 2009; Depoortère et al., 2009; Baskerville et al., 2009).
Een andere belangrijke nieuwe bevinding is dat oxytocine de erectie van de penis induceert wanneer deze niet alleen in de paraventriculaire kern of het CA1-veld van de hippocampus wordt geïnjecteerd, maar ook in het ventrale tegmentale gebied, het ventrale submiculum en de corticale posterische kern van de amygdala. Deze hersengebieden werden niet getest in eerdere studies die aantoonden dat oxytocine bij mannelijke ratten spontane erectiestoornissen van de penis verhoogde, hoewel ze net als de lumbo-sacrale ruggenmerg-oxytocinerge projecties van de paraventriculaire kern ontvangen. Oxytocine werd inderdaad gevonden in staat tot het verhogen van spontane erectie-episodes van de penis, die optreden bij volwassen mannelijke ratten bij afwezigheid van enige seksuele prikkels, zoals die welke afkomstig zijn van de aanwezigheid van een toegankelijke of ontoegankelijke, met oestrogeen-progesteron geprimede, ovariëctomiseerde vrouwelijke rat of manipulatie van de geslachtsdelen, geïnjecteerd in de paraventriculaire kern en het CA1-veld van de hippocampus, maar niet in het dorsale submembraan, het laterale septum, de caudate nucleus, het mediale preoptische gebied, de ventromediale kern en de supraoptische kern (Melis et al. , 1986). In al deze studies werd de erectie van de penis gewoonlijk geteld wanneer de penis uit de penisschede tevoorschijn kwam door een waarnemer die zich tijdens het experiment niet direct bewust was van de gegeven behandelingen of later door het experiment te observeren dat was vastgelegd op een videoband met een videocamerainrichting. Elke penis-erectie-episode duurt 0.5-1 min. En gaat meestal gepaard met penisverzorging en / of heupflexies. In deze ratten wordt meestal geen experiment gedaan om het effect van seksuele ervaring of leeftijd vast te stellen of wanneer deze ratten kunnen worden verdeeld in lage of hoge responders op het pro-erectiele effect van oxytocine dat in de verschillende hersengebieden wordt geïnjecteerd. Dit geldt ook voor de meeste onderzoeken naar het pro-erectiele effect van andere neuropeptiden en geneesmiddelen die spontane erectie-episoden van de penis verhogen, waaronder dopamine-agonisten, exciterende aminozuren, ACTH-MSH, hexarelin en VGF-peptiden. Het pro-erectiele effect van deze verbindingen is echter herhaaldelijk bevestigd door telemetriemethoden, die het optreden van erectie van de penis bepalen door de toename in intracaverneuze druk die spontaan optreedt of na toediening van deze verbindingen op verschillende routes, dat wil zeggen, systemisch, intracerebroventricularly of rechtstreeks in specifieke hersenkernen, na het implanteren van een druk-microtransductor direct in de caverneuze corpora (zie Bernabè et al., 1999). In het ventrale tegmentale gebied induceert het ventrale submiculum en de posteromediale kern van de amygdala ook oxytocine de erectie van de penis door in te werken op oxytocinerge receptoren. Dit leidt tot de activering van mesolimbische dopaminerge neuronen afkomstig uit het ventrale tegmentale gebied en uitsteekt naar de schil van de nucleus accumbens, zoals gemeten door de toename in extracellulaire dopamine concentratie in het dialysaat verkregen uit de schil van nucleus accumbens en door de vermindering van de erectiele respons geïnduceerd door het peptide geïnjecteerd in deze extra-hypothalamische gebieden, gevonden na de blokkering van dopaminerge receptoren in de nucleus accumbens (zie hieronder). Wat betreft de mechanismen die worden geactiveerd door de stimulatie van oxytocinerge receptoren in deze hersengebieden, die leiden tot de activering van mesolimbische dopaminerge neuronen en tot erectie van de penis, zijn de best geklaarde die welke optreden in het caudale ventrale tegmentale gebied. Sterker nog, hier laten farmacologische en immunofluorescentie resultaten zien dat oxytocine zenuwuiteinden invloed hebben op de cellichamen van dopaminerge neuronen die naar de schil van de nucleus accumbens projecteren (Melis et al., 2007, 2009a; Succu et al., 2008). Veel van deze neuronen zijn rijk aan stikstofoxidesynthase en in guanylaatcyclase. De stimulering van oxytocinerge receptoren in de cellichamen van deze dopaminergische neuronen veroorzaakt de activering van stikstofoxidesynthase leidend tot een verhoogde stikstofoxide-productie. Stikstofoxide activeert op zijn beurt guanylaatcyclase, waardoor de concentratie van cyclisch GMP wordt verhoogd, wat leidt tot de activering van mesolimbische dopaminerge neuronen en tot de afgifte van dopamine in de nucleus accumbens, zoals gemeten door de toename van extracellulaire dopamine in het dialysaat uit de nucleus accumbens verkregen door intra-cerebrale microdialyse (Succu et al., 2008 ). Dopamine vrijgemaakt in de nucleus accumbens activeert op zijn beurt neurale paden die leiden naar erectie van de penis. Dit wordt ondersteund door het vermogen van dopamine-receptorantagonisten haloperidol en / of cis-flupentixol geïnjecteerd in de nucleus accumbens om door het ventrale tegmentale gebied oxytocine geïnduceerde erectie van de penis te verminderen (Succu et al., 2008). Een van de pro-erectiele routes lijkt incortale-hypothalamische dopaminerge neuronen te activeren, in het bijzonder die die naar de cellichamen van paraventriculaire oxytocinerge neuronen projecteren. Inderdaad oxytocine geïnjecteerd in het caudale ventrale tegmentale gebied verhoogt extracellulair dopamine niet alleen in de nucleus accumbens, maar ook in de paraventriculaire kern, en de blokkade van dopaminereceptoren in de paraventriculaire nucleus reduceert significant de door het ventrale tegmentale gebied oxytocine-geïnduceerde erectie van de penis (Succu et al. , 2007, 2008; Melis et al., 2007, 2009a). Het bestaan van deze nucleus accumbens dopamine-paraventriculaire dopamine-paraventriculaire oxytocine-ventrale tegmentale gebied oxytocine-dopamine links wordt ook gesuggereerd door het vermogen van een pro-erectiele dosis apomorfine en van de D4-receptoragonist PD 168077 die in de paraventriculaire kern is geïnjecteerd om extracellulaire dopamine in de schil van de nucleus accumbens te verhogen (Succu et al., 2007), reactie dat wordt afgeschaft door d (CH2) 5Tyr (Me) -Orn8-vasotocine gegeven in het ventrale tegmentale gebied (Melis et al., 2009a, zie ook hieronder). Er is echter nog meer werk nodig om de neurale paden te identificeren die de nucleus accumbens verbinden met het incerto-hypothalamische dopaminerge systeem.
Het mechanisme waarmee oxytocine de erectie van de penis induceert en de mesolimbische dopaminerge neuronen activeert wanneer het in het ventrale subiculum of in de posteromediale kern van de amygdala wordt geïnjecteerd, is op dit moment slechts gedeeltelijk te begrijpen. In deze gebieden activeert oxytocine ook zijn eigen receptoren die leiden tot de activering van stikstofoxide-synthase, waardoor de productie van stikstofoxide wordt verhoogd. Stikstofmonoxide op zijn beurt activeert onbekende efferente projecties, die blijkbaar de glutamaterge neurotransmissie in het ventrale tegmentale gebied verhogen. Glutaminezuur stimuleert vervolgens de mesolimbische dopaminerge neuronen die leiden tot de erectie van de penis.Deze hypothese wordt voornamelijk ondersteund door het vermogen van oxytocine geïnjecteerd in het ventrale submiculum om extracellulair glutaminezuur in het ventrale tegmentale gebied te verhogen (Fig. 3), en van de niet-competitieve NMDA-receptorantagonist (+) MK-801 geïnjecteerd in het ventrale tegmentale gebied, maar niet in de nucleus accumbens, om de erectie van de penis veroorzaakt door oxytocine geïnjecteerd ofwel in het ventrale submiculum of in de posteromediale kern te verminderen van de amygdala (Melis et al., 2009b). Op dit moment zijn er meer details beschikbaar voor de door de ventrale subiculum oxytocine geïnduceerde erectie van de penis. Hier lijkt de door oxytocine geïnduceerde erectie van de penis secundair te zijn aan de activering van oxytocinerge receptoren die zich bevinden in de cellichamen van stikstofoxide-synthase bevattende neuronen. Dit veroorzaakt een toename van de productie van stikstofmonoxide, dat glutamaterge neurotransmissie activeert door op te treden als een intercellulaire boodschapper met een mechanisme vergelijkbaar met dat beschreven voor langdurige versterking (zie Snyder, 1992; Southam en Garthwaite, 1993; Schuman en Madison, 2004) . In overeenstemming met deze hypothese vindt oxytocine-geïnduceerde erectie van de penis gelijktijdig plaats met een toename van extracellulair glutaminezuur in het dialysaat uit het ventrale submembraan, en stimuleert stimulatie van aminozuurreceptoren in het ventrale submiculum door NMDA, penis-erectie. Glutaminezuur activeert op zijn beurt neurale efferente projecties, die leiden tot de activering van mesolimbische dopaminerge neuronen in het ventrale tegmentale gebied, zoals hierboven vermeld. Als deze mechanismen ook in de posteromediale kern van de amygdala werkzaam zijn, is deze op dit moment niet bekend. Bovendien zijn verdere studies nodig om te bewijzen dat (1) oxytocinerge zenuwuiteinden en receptoren in het ventrale subiculum en in de posteromediale kern van de amygdala gelokaliseerd zijn in cellichamen van neuronen die stikstofoxide-synthase bevatten, (2) als deze neuronen uiteindelijk zijn onder controle van excitatory aminozuur (glutamaterge) synapsen en (3) om het signaalsysteem te identificeren dat wordt geactiveerd door stikstofmonoxide. In dit opzicht is het opmerkelijk dat het vermogen van oxytocine om de activiteit van stikstofoxide-synthase in de celmassa's van dopaminerge neuronen in het caudale ventrale tegmentale gebied en van nog onbekende neuronen in het ventrale submiculum en de posteromediale kern van de amygdala te verhogen, terugroept het vermogen van oxytocine om stikstofoxide-synthase in de cellichamen van oxytocinerge neuronen in de paraventriculaire kern te activeren (Melis et al., 1997). Echter, terwijl in het ventrale tegmentale gebied de verhoogde productie van stikstofoxide in de cellichamen van dopaminerge neuronen leidt tot de activering van deze neuronen door guanylaatcyclase en toenemende cyclische GMP te activeren, komt dit niet voor in de paraventriculaire kern. Dienovereenkomstig induceert 8-broom-cyclische GMP geïnjecteerd in de paraventriculaire kern niet de erectie van de penis, terwijl dit gebeurt wanneer geïnjecteerd in het ventrale tegmentale gebied. Een andere signaalroute anders dan het stikstofoxidecyclische GMP-systeem is dan betrokken op het paraventriculaire niveau bij de activering van oxytocinerge neuronen die de erectie van de penis mediëren door endogeen en / of exogeen stikstofoxide (Melis en Argiolas, 1995b; Melis et al., 1997) (Fig. . 1). Aan de andere kant lijkt cyclisch GMP in het ventrale tegmentale gebied ook een sleutelrol te spelen bij de activering van mesolimbische dopaminerge neuronen en bij de toename van extracellulaire dopamine die voorkomt in het dialysaat dat wordt verkregen uit de schaal van de nucleus accumbens van mannelijke ratten geselecteerd voor het tonen of niet laten zien van niet-erotische penis erecties wanneer deze in de aanwezigheid van een ontoegankelijke ovariectomized receptieve (met oestrogeen + progesteron behandelde) vrouwelijke rat wordt gebracht. In deze experimentele omstandigheden wordt bij mannelijke ratten die niet-contact penis-erecties vertonen een toename van de extracellulaire dopamineconcentratie gevonden zoals verwacht, en deze toename wordt verder verhoogd, hoewel slechts bescheiden, door fosfodiësteraseremmers in het caudale ventraal tegmentale gebied (Sanna et al., 2009). Daarentegen werd bij mannelijke ratten die geen erecties zonder contact vertoonden en waarbij geen merkbare toename van extracellulaire dopamine in de nucleus accumbens werd gevonden, een duidelijk verhoogde concentratie van extracellulaire dopamine gevonden door fosfodiësteraseremmers die in het caudale ventrale tegmentale gebied werden toegediend en er werden erecties zonder contact waargenomen (Sanna et al., 2009).
Het vermogen van oxytocine geïnjecteerd in het ventrale tegmentale gebied, in het ventrale subiculum en in de corticale posterische cortex van de amygdala, samen met die van dopamine-agonisten geïnjecteerd in de paraventriculaire kern, om penis-erectie te induceren en om mesolimbische dopaminerge neuronen te activeren verdient enige commentaar . Ten eerste kunnen mechanismen die vergelijkbaar zijn met degene die hierboven worden genoemd, werkzaam zijn wanneer erectie van de penis plaatsvindt in fysiologische contexten, zoals tijdens copulatie (wanneer er sprake is van erectiestoornissen in de erectie) of tijdens niet-contact penis-erecties. Deze erecties zijn door feromonen gemedieerde penis erecties niet te onderscheiden van die geïnduceerd door geneesmiddelen of oxytocine, die optreden wanneer seksueel krachtige mannelijke ratten worden geplaatst in de aanwezigheid van een ontoegankelijke receptieve (ovariectomized oestrogeen + progesteron geprimede) vrouwelijke rat en worden beschouwd als een index van seksuele opwinding (Sachs, 1997, 2007). Hoewel deze resultaten niet aantonen dat oxytocine in deze gebieden een rol speelt bij erectie van de penis die optreedt in fysiologische contexten of na toediening van geneesmiddelen, versterken ze de vroege bevindingen verder, wat suggereert dat deze hersengebieden behoren tot die gebieden waar oxytocine centraal wordt toegediend ter verhoging van de hersenactiviteit. niet alleen spontane penisontstekingsepisodes gezien na pro-erectiele medicijnen, maar ook om mannelijk (en vrouwelijk) seksueel gedrag te verbeteren (zie Argiolas en Melis, 2004 en referenties daarin). Dienovereenkomstig neemt de oxytocine-concentratie toe in de hippocampus van mannelijke ratten die zijn behandeld met een pro-erectiele dosis apomorfine, een klassieke dopamine-agonist (Melis et al., 1990) en d (CH2) 5Tyr (Me) -Orn8-vasotocine, die oxytocine blokkeert receptoren, is buitengewoon effectief, niet alleen bij het verslechteren van copulatiegedrag (Argiolas et al., 1987a), maar ook het faciliterende effect van apomorfine op mannelijk copulatiegedrag (Argiolas et al., 1987b) bij seksueel sterke mannelijke ratten, tijdens welke in erectiestelsel erotische penis optreden. d (CH2) 5Tyr (Me) -Orn8-vasotocine is ook buitengewoon krachtig in het verminderen van niet-contact erecties in seksueel krachtige mannelijke ratten, wanneer gegeven in hoeveelheden van nanogrammen in de laterale ventrikels, maar niet in de PVN (Melis et al., 1999a).
Ten tweede spelen mesolimbische dopaminerge neuronen een cruciale rol in de motivationele en belonende eigenschappen van natuurlijke, bekrachtigende stimuli, zoals voedsel, water en seksuele activiteit (Fibiger en Phillips, 1988; Wise en Rompre, 1989; Everitt, 1990). Met name de dopamine die door deze neuronen wordt vrijgegeven, zou de transpositie van de motivationele aspecten van natuurlijke stimuli naar doelgericht gedrag mediëren, bijvoorbeeld in het geval van seksuele activiteit, het zoeken naar een seksuele partner en geslachtsgemeenschap om beloning en bevrediging te bereiken (Goto en Grace, 2005). Dienovereenkomstig neemt de extracellulaire dopamineconcentratie toe in dialysaat uit de nucleus accumbens van seksueel potente mannelijke ratten tijdens blootstelling aan een ontoegankelijke, ovariectomiseerde, met oestrogeen en progesteron geprimeerde, ontvankelijke vrouwelijke rat, en deze toename was zelfs nog groter wanneer de mannelijke rat mocht copuleren met de ontvankelijke vrouwelijke rat (Pfaus en Everitt, 1995).
Ten derde ondersteunen de huidige resultaten de hypothese dat een neuraal circuit de paraventriculaire kern verbindt met het ventrale tegmentale gebied direct of indirect (door het ventrale submiculum en / of de corticale corticale kern van de amygdala) en de nucleus accumbens, en vanaf hier door onbekend terug naar de paraventriculaire nucleus om de activiteit te controleren van oxytocinerge neuronen die naar het ruggenmerg leiden en de erectie van de penis en van oxytocinerge neuronen die naar het ventrale tegmentale gebied, het ventrale submiculum en de corticale posteraire cortex van de amygdala bewegen, moduleren op deze manier activiteit van mesolimbische dopaminerge neuronen (Fig. 4). Dit complexe neurale circuit kan een rol spelen bij de integratie van neurale activiteiten die betrokken zijn bij de beheersing van de consumptieve (erectiele-ejaculatie) en anticiperende (motiverende en belonende) aspecten van mannelijk seksueel gedrag in fysiologische contexten. Sterker nog, extra-cellulaire dopamine neemt toe in de nucleus accumbens (Pfaus en Everitt, 1995) en in de paraventriculaire kern van seksueel krachtige mannelijke ratten tijdens blootstelling aan een ontoegankelijke vrouwelijke rat, wanneer niet-contact erecties optreden, en zelfs meer wanneer copulatie is toegestaan, bijv. wanneer er sprake is van erectiestoornissen in de erectie (Melis et al., 2003). Dus, hoewel verdere studies nodig zijn om de rol van endogene oxytocine in het ventrale tegmentale gebied, het ventrale submiculum en de amygdala tijdens niet-contact erecties en seksueel gedrag te verduidelijken, kan het dan redelijk zijn om aan te nemen dat dit hypothetische neurale circuit, terwijl het bijdraagt aan de consumptie-aspecten van seksueel gedrag, in dezelfde tijd kan ook het mesolimbische dopaminerge systeem worden geactiveerd dat een neuraal substraat verschaft voor het verklaren van de lonende eigenschappen van seksuele activiteit (Everitt, 1990; Pfaus en Everitt, 1995). In dit opzicht is het opmerkelijk dat het mesolimbische dopaminerge systeem geactiveerd door oxytocine geïnjecteerd in het ventrale tegmentale gebied hetzelfde is geactiveerd door drugs van misbruik zoals opiaten, cannabinoïden, amfetamine, cocaïne en alcohol (Tanda et al., 1997), en dat oxytocine in staat was de tolerantie en afhankelijkheid van cocaïne, morfine, alcohol en cannabinoïden te verminderen (Kovacs et al., 1998; Cui et al., 2001). Concluderend lijkt het erop dat oxytocine niet alleen vrijkomt in het ventrale tegmentale gebied, maar ook in het ventrale subiculum en de corticale posterische corticale kern van de amygdala, mesolimbische dopaminerge neuronen kan activeren, die mogelijk betrokken zijn bij de positieve en belonende effecten van seksuele activiteit . De activering van mesolimbische dopaminerge neuronen kan direct zijn, door oxytocinerge receptoren in de cellichamen van mesolimbische dopaminerge neuronen, of indirect door de activering van glutaminezuur neurotransmissie in het ventrale tegmentale gebied.
Dopamine vrijgemaakt in de nucleus accumbens omhult op zijn beurt de activiteit van de incerto-hypothalamische dopaminerge neuronen in de paraventriculaire kern die ofwel erectie van de penis veroorzaakt (via activering van oxytocinerge neuronen die naar het ruggenmerg projecteren), of seksuele motivatie en beloning (via activatie van oxytocinerge cellen). neuronen die naar het ventrale tegmentale gebied, het ventrale subiculum of de cortexkern van de posterieure cortex van de amygdala projecteren). Omdat dopamine ook vrijkomt in de kern van accumbens en in de paraventriculaire kern wanneer erectie van de penis plaatsvindt in fysiologische contexten (bijv. Niet-contact erecties en copulatie) (Succu et al., 2007; Melis et al., 2003, 2007), is het waarschijnlijk dat centrale oxytocinerge neuronen deelnemen aan neurale circuits die een interactie tussen het mesolimbische en het incerto-hypothalamische dopaminerge systeem mediëren. Deze neurale circuits kunnen een rol spelen, niet alleen in de consumerende fase van seksueel gedrag (bijvoorbeeld penis erectie en copulatie), maar ook in seksuele motivatie, seksuele opwinding en seksuele beloning.
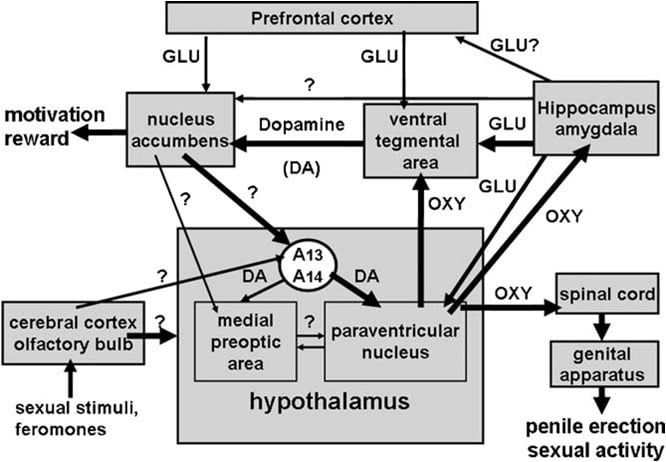
Schematische weergave van een hypothetisch neuraal circuit waarbij oxytocine de seksuele motivatie, beloning en seksuele prestaties beïnvloedt, zoals gesuggereerd door de resultaten van dit hoofdstuk en eerdere rapporten. Oxytocinerge neuronen die afkomstig zijn uit de nucleus paraventricularis en projecteren naar het ruggenmerg, bijvoorbeeld wanneer ze geactiveerd worden door dopamine en glutaminezuur (maar ook door andere neurotransmitters en/of neuropeptiden), faciliteren de erectie en seksuele prestaties door oxytocinerge neuronen te activeren die naar het ruggenmerg projecteren. Dopamine en glutaminezuur (maar ook neurotransmitters en neuropeptiden) in de nucleus paraventricularis activeren ook oxytocinerge neuronen die projecteren naar het ventrale tegmentale gebied, waardoor mesolimbische dopaminerge neuronen die projecteren naar de nucleus accumbens worden geactiveerd, wat de seksuele motivatie en beloning moduleert. Dopamine dat vrijkomt in de nucleus accumbens (NAs) activeert op zijn beurt nog onbekende neurale paden, die de activiteit van incerto-hypothalamische dopaminerge neuronen (afkomstig uit de A13-A14-groepen van Dahlstrom en Fuxe) verhogen. Deze neuronen beïnvloeden onder andere oxytocinerge neuronen, waaronder die welke projecteren naar het ruggenmerg, wat leidt tot een erectie van de penis. Dit circuit kan ook worden geactiveerd door oxytocine, geïnjecteerd niet alleen in het caudale ventrale tegmentale gebied, maar ook in het ventrale subiculum en de amygdala. Deze gebieden ontvangen eveneens een oxytocinerge innervatie vanuit de paraventriculaire kern, mogelijk via directe of indirecte glutamaterge efferente vezels naar het ventrale tegmentale gebied, wat leidt tot modulatie van zowel de seksuele motivatie als de erectie van de penis. Tot slot kan het bovenstaande circuit ook geactiveerd worden door seksuele prikkels en feromonen, aangezien de extracellulaire dopamine en glutaminezuurconcentratie in de paraventriculaire kern (en in het mediale preoptische gebied) toenemen tijdens feromoon-gemedieerde erecties zonder fysiek contact en copulatie (zie de literatuurlijst voor relevante referenties).
Erkenningen Dit werk werd gedeeltelijk ondersteund door een subsidie van het Italiaanse ministerie van Universiteit en van onderzoek aan AA en MRM
Referenties
Andersson, KE, 2001. Farmacologie van erectie van de penis. Pharmacol. Rev 53, 417-450. Argiolas, A., 1994. Stikstofmonoxide is een centrale bemiddelaar voor de erectie van de penis. Neurofarmacologie 33, 1339-1344. Argiolas, A., 1999. Neuropeptiden en seksueel gedrag. Neurosci. Biobehav. Rev 23, 1127-1142. Argiolas, A., Gessa, GL, 1991. Centrale functies van oxytocine. Neurosci. Biobehav. Rev 15, 217-231. Argiolas, A., Melis, MR, 1995. Neuromodulatie van erectie van de penis: een overzicht van de rol van neurotransmitters en neuropeptiden. Prog. Neurobiol. 47, 235-255. Argiolas, A., Melis, MR, 2004. De rol van oxytocine en de paraventriculaire kern in het seksuele gedrag van mannelijke zoogdieren. Physiol. Behav. 83, 309-317. Argiolas, A., Melis, MR, 2005. Centrale controle van de erectie van de penis: rol van de paraventriculaire kern van de hypothalamus. Prog. Neurobiol. 76, 1-21. Argiolas, A., Collu, M., Gessa, GL, Melis, MR, Serra, G., 1988. De oxytocine-antagonist d (CH2) 5Tyr (Me) -Orn8-vasotocine antagoniseert het mannelijke copulatiegedrag bij ratten. E. J. Pharmacol. 149, 389-392. Argiolas, A., Collu, M., D'Aquila, P., Gessa, GL, Melis, MR, Serra, G., 1989. Apomorfine-stimulatie van mannelijk copulatiegedrag wordt voorkomen door de oxytocine-antagonist d (CH2) 5Tyr (Me) -Orn8-vasotocine in ratten. Pharmacol. Biochem. Behav. 33, 81-83. Argiolas, A., Melis, MR, Gessa, GL, 1985. Intraventriculaire oxytocine induceert de erectie van geeuwen en penis in ratten. E. J. Pharmacol. 117, 395-396. Argiolas, A., Melis, MR, Gessa, GL, 1986. Oxytocine: een extreem krachtige inductor van erectie van de penis en geeuwen bij mannelijke ratten. E. J. Pharmacol. 130, 265-272. Argiolas, A., Melis, MR, Mauri, A., Gessa, GL, 1987a. Paraventriculaire nucleus laesie voorkomt dat gapen en penis erectie wordt veroorzaakt door apomorfine en oxytocine, maar niet door ACTH bij ratten. Brain Res. 421, 349-352. Argiolas, A., Melis, MR, Vargiu, L., Mauri, A., Gessa, GL, 1987b. d (CH2) 5Tyr (Me) -Orn8-vasotocine, een krachtige oxytocine-antagonist, antagoniseert de erectie van de penis en geeuw veroorzaakt door oxytocine en apomorfine, maar niet door ACTH 1-24. E. J. Pharmacol. 134, 221-224. Argiolas, A., Melis, MR, Stancampiano, R., Gessa, GL, 1990. _-Conotoxine voorkomt apomorfine en door oxytocine geïnduceerde erectie van de penis en geeuwen bij mannelijke ratten. Pharmacol. Biochem. Behav. 37, 253-257. Arletti, R., Bertolini, A., 1985. Oxytocine stimuleert het lordose-gedrag bij vrouwelijke ratten. Neuropeptiden 6, 247-255. Arletti, R., Bazzani, C., Castelli, M., Bertolini, A., 1985. Oxytocine verbetert de mannelijke copulatiegedrag bij ratten. Horm. Behav. 19, 14-20. Arletti, R., Benelli, A., Bertolini, A., 1990. Seksueel gedrag van oudere mannelijke ratten wordt gestimuleerd door oxytocine. E. J. Pharmacol. 179, 377-382. Arletti, R., Calzà, L., Giardino, L., Benelli, A., Cavazzutti, E., Bertolini, A., 1997. Seksuele impotentie is geassocieerd met een verminderde productie van oxytocine en een verhoogde productie van opioïde peptiden in de paraventriculaire kern van de hypothalamus. Neurosci. Lett. 233, 65-68. Bancila, M., Giuliano, F., Rampin, O., Mailly, P., Brisorgueil, MJ, Clas, A., Verge, D., 2002. Bewijs voor een directe projectie van de paraventriculaire kern van de hypothalamus naar hypothetische serotoninerge neuronen van de nucleus paragigantocellularis is betrokken bij de controle van de erectie bij ratten. E. J. Neurosci. 16, 1240-1249. Burnett, AL, Lowenstein, CJ, Bredt, DS, Chang, TSK, Snyder, SH, 1992. Stikstofmonoxide: een fysiologische bemiddelaar voor de erectie van de penis. Wetenschap 257, 401-403. Baskerville, TA, Douglas, AJ, 2008. Interactie tussen dopamine en oxytocine bij de beheersing van seksueel gedrag. Prog. Brain Res. 170, 277-289. Baskerville, TA, Allard, J., Wayman, C., Douglas, AJ, 2009. Dopamine-oxytocine-interactie bij erectie van de penis. E. J. Neurosci. 30, 2151-2164. Benelli, A., Bertolini, A., Poggioli, R., Cavazzutti, E., Calzà, L., Giardino, L., Arletti, R., 1995. Stikstofmonoxide is betrokken bij mannelijk seksueel gedrag van ratten. E. J. Pharmacol. 294, 505-510. Bernabè, J., Rampin, O., Sachs, BD, Giuliano, F., 1999. Intracaverneuze druk tijdens erectie bij ratten: een integrale benadering op basis van telemetrische opname. Am. J. Physiol. 276, R441-R449. Bitner, RS, Nikkel, AL, Otte, S., Martino, B., Barlow, EH, Bhatia, P., Stewart, AO, Brioni, JD, Decker, MW, Moreland, RB, 2006. Dopamine D4-receptorsignalering in de paraventriculaire hypothalamuskern van de rat: bewijs van natuurlijke koppeling met directe vroege geninductie en mitogeen-geactiveerde proteïnekinasefosforylatie. Neurofarmacologie 50, 521-531. Brioni, JD, Moreland, RB, Cowart, M., Hsieh, GC, Stewart, AO, Hedlund, P., Donnelly-Roberts, DL, Nakane, M., Lynch 3rd., J., Kolasa, T., Polakowski , JS, Osinski, MA, Marsh, K., Andersson, KE, Sullivan, JP, 2004. Activering van dopamine D4-receptoren door ABT-724 induceert de erectie van de penis bij ratten. Proc. Natl. Acad. Sci. Verenigde Staten van Amerika 101, 6758-6763. Buijs, RM, 1978. Intra- en extra-hypothalamische vasopressine- en oxytocine-routes bij de rat. Cell Tissue Res. 192, 423-435. Buijs, RM, Geffard, M., Pool, CW, Hoorneman, EMD, 1984. De dopaminerge innervatie van de supra-optische en paraventriculaire nucleus. Een licht- en elektronenmicroscopisch onderzoek. Brain Res. 323, 65-72. Caldwell, JD, Prange, AJ, Pedersen, CA, 1986. Oxytocine vergemakkelijkt de seksuele ontvankelijkheid van met oestrogeen behandelde vrouwelijke ratten. Neuropeptiden 7, 175-189. Cameron, JL, Pomerantz, SM, Layden, LM, Amico, JA, 1992. Dopaminerge stimulatie van oxytocine-concentraties in het plasma van mannelijke en vrouwelijke apen door apomorfine en een D2-receptoragonist. J. Clin. Endocrinol. Metab. 75, 855-860. Canteras, NS, Simerly, RB, Swanson, LW, 1995. Organisatie van projecties van de mediale kern van de amygdala: een PHAL-onderzoek bij de rat. J. Comp. Neurol. 360, 213-245. Carmichael, MS, Humbert, R., Dixen, J., Palmisano, G., Greeleaf, W., Davidson, JM, 1987. Plasma-oxytocine neemt toe in de menselijke seksuele respons. J. Clin. Endocrinol. Metab. 64, 27-31. Carter, CS, 1992. Oxytocine en seksueel gedrag. Neurosci. Biobehav. Rev 16, 131-144. Carter, CS, Lederhendler, II, Kirkpatrick, B., 1997. De Interactive Neurobiology of Affiliation, Annals of the New York Academy of Sciences, vol. 807. De New York Academy of Sciences, New York. Castelli, MP, Piras, AP, Melis, T., Succu, S., Sanna, F., Melis, MR, Collu, S., Ennas, MG, Diaz, G., Mackie, K., Argiolas, A. , 2007. Cannabinoïde CB1-receptoren in de paraventriculaire kern en centrale controle van de erectie van de penis: immunocytochemie, autoradiografie en gedragsstudies. Neuroscience 147, 197-206. Chen, KK, Chang, LS, 2003. Effect van exciterende aminozuurreceptoragonisten op de erectie van de penis na toediening aan de paraventriculaire kern van de hypothalamus bij ratten. J. Urol. 62, 575-580. Chen, KK, Chan, JYH, Chang, LS, Chen, MT, Chang, SHH, 1992. Elicitatie van erectie van de penis na activering van de hippocampusformatie bij de rat. Neurosci. Lett. 141, 218-222. Chen, KK, Chan, JYH, Chang, LS, 1999. Dopaminerge neurotransmissie in de paraventriculaire kern van de hypothalamus bij centrale regulatie van erectie van de penis bij de rat. J. Urol. 162, 237-242. Collins, GT, Truccone, A., Haji-Abdi, F., Newman, AH, Grundt, P., Rice, KC, Husbands, SM, Greedy, BM, Enguehard-Gueiffer, C., Gueiffer, A., Chen , J., Wang, S., Katz, JL, Grandy, DK, Sunahara, RK, Woods, JH, 2009. Pro-erectiele effecten van dopamineD2-achtige agonisten worden gemedieerd door de D3-receptor bij ratten en muizen. J. Pharmacol. Exp. Ther. 329, 210-217. Coolen, LM, Allard, J., Truitt, WA, McKenna, KE, 2004. Centrale regulatie van ejaculatie. Physiol. Behav. 83, 203-215. Cui, SS, Bowen, RC, Gu, GB, Hannesson, BK, Yu, PH, Zhang, X., 2001. Preventie van cannabinoïde ontwenningssyndroom door lithium: betrokkenheid van oxytocinerge neuronale activering. J. Neurosci. 21, 9867-9876. Dahlstrom, A., Fuxe, K., 1964. Bewijs voor het bestaan van monoamine-bevattende neuronen in het centrale zenuwstelsel. I. Demonstratie van monoaminen in de cellichamen van hersenstamneuronen. Acta Physiol. Scand. 62 (suppl. 232), 1-54. Depoortère, R., Bardin, L., Rodrigues, M., Abrial, E., Aliaga, M., Newman-Tancredi, A., 2009. Penisectie en geeuwen geïnduceerd door dopamine D2-achtige receptoragonisten bij ratten: invloed van stam en bijdrage van dopamine D2, maar niet D3- en D4-receptoren. Behav. Pharmacol. 20, 303-311. Domes, G., Heinrichs, M., Buchel, C., Braus, DF, Herpertz, SC, 2007. Oxytocine verzacht amygdala-reacties op emotionele gezichten ongeacht de valentie. Biol Psychiatrie 62, 11871190. Dominguez, J., Riolo, JV, Xu, Z., Hull, ME, 2001. Regulatie door de mediale amygdala van copulatie en mediale preoptische dopamine-afgifte. J. Neurosci. 21, 349-355. Donaldson, ZR, Young, LJ, 2009. Oxytocine, vasopressine en de neurogenetica van socialiteit. Wetenschap 322, 900-904. Eaton, RG, Markowski, VF, Lumley, LA, Thompson, JT, Moses, J., Hull, EM, 1991. D2-receptoren in de paraventriculaire nucleus reguleren genitale responsen en copulatie bij mannelijke ratten. Pharmacol. Biochem. Behav. 39, 177-181. Ebner, K., Bosch, OJ, Krömer, SA, Singewald, N., Neumann, ID, 2005. De afgifte van oxytocine in de centrale amygdala van de rat moduleert het stress-coping-gedrag en de afgifte van exciterende aminozuren. Neuropsychopharmacology 30, 223-230. Enguehard-Gueiffier, C., Hübner, H., El Hakmaoui, A., Allouchi, H., Gmeiner, P., Argiolas, A., Melis, MR, Gueiffier, A., 2006. 2 - [(4-fenylpiperazine-1-yl) methyl] imidazo (di) azinen als selectieve D4-liganden. Inductie van erectie van de penis door 2- [4- (2-methoxyfenyl) piperazin-1-ylmethyl] imidazo [1,2-a] pyridine (PIP3EA), een krachtige en selectieve D4-agonist. J. Med. Chem. 49, 3938-3947. Everitt, BJ, 1990. Seksuele motivatie: een neurale en gedragsmatige analyse van de mechanismen die ten grondslag liggen aan mannelijke ratten met positieve en coperatieve reacties. Neurosci. Biobehav. Rev 14, 217-232. Fibiger, HC, Phillips, AG, 1988. Mesocorticolimbic dopamine systeem en beloning. Ann. N. Y. Acad. Sci. 5, 206-215. Frans, SJ, Totterdell, S., 2003. Individuele nucleus accumbens-projectie-neuronen ontvangen zowel basolaterale amygdala- als ventrale subiculaire afferenten bij ratten. Neuroscience 119, 19-31. 954 MR Melis, A. Beoordelingen over Argiolas / Neuroscience and Biobehavioral 35 (2011) 939-955 Freund-Mercier, MJ, Richard, P., 1981. Excitatorische effecten van intraventriculaire injecties van oxytocine op de reflex van de melkafgifte bij de rat. Neurosci. Lett. 23, 193-198. Freund-Mercier, MJ, Richard, P., 1984. Elektrofysiologisch bewijs voor faciliterende controle van oxytocine neuronen door oxytocine tijdens het zogen in de rat. J. Physiol. (Lond.) 352, 447-466. Freund-Mercier, MJ, Stoeckel, ME, 1995. Somatodendritische autoreceptoren op oxytocine-neuronen. In: Ivell, R., Russel, JA (Eds.), Oxytocine, Cellulaire en Moleculaire Benaderingen in Geneeskunde en Onderzoek. Adv. Exp. Med. Biol., 365. Plenum Press, New York en Londen, pp. 185-194. Freund-Mercier, MJ, Stoeckel, ME, Palacios, JM, Pazos, JM, Richard, PH, Porte, A., 1987. Farmacologische kenmerken en anatomische verdeling van 3H oxytocine-bindingsplaatsen in het Wistar-rattenbrein bestudeerd met autoradiografie. Neuroscience 20, 599-614. Giuliano, F., Rampin, O., 2000. Centrale controle van penis erectie. Neurosci. Biobehav. Rev 24, 517-533. Giuliano, F., Allard, J., 2001. Dopamine en seksuele functie. Int. J. Impotentie Res. 13 (suppl. 3), 18-28. Giuliano, F., Rampin, O., 2004. Neurale controle van de erectie. Physiol. Behav. 83, 189-201. Giuliano, F., Bernabè, J., McKenna, KE, Longueville, F., Rampin, O., 2001. Spinal proerectiel effect van oxytocine bij verdoofde ratten. Am J. Physiol. Regul. Integ. Comp. Physiol. 280, R1870-R1877. Ga naar, Y., Genade, AA, 2005. Dopaminerge modulatie van limbische en corticale aandrijving van nucleus accumbens in doelgericht gedrag. Nat. Neurosci. 8, 805-812. Hawthorn, J., Ang, VT, Jenkins, JS, 1985. Effecten van laesies in de hypothalamische paraventriculaire, supraoptische en suprachiasmatische kernen op vasopressine en oxytocine in de hersenen van de rat en het ruggenmerg. Brain Res. 346, 51-57. Heier, RF, Dolak, LA, Duncan, JN, Hyslop, DK, Lipton, MF, Martin, LJ, Mauragis, MA, Piercey, MF, Nichols, NF, Schreur, PJ, Smith, MW, Moon, MW, 1997. Synthese en biologische activiteiten van (R) -5,6-dihydro-N, N-dimethyl-4H-imidazo [4,5,1-ij] chinoline-5-amine) en zijn metabolieten. J. Med. Chem. 40, 639-646. Hsieh, GC, Hollingsworth, PR, Martino, B., Chang, R., Terranova, MA, O'Neill, AB, Lynch, JJ, Moreland, RB, Donnelly-Roberts, DL, Kolasa, T., Mikusa, JP , McVey, JM, Marsh, KC, Sullivan, JP, Brioni, JD, 2004. Centrale mechanismen die de erectie van de penis regelen bij bewuste ratten: de dopaminerge systemen die verband houden met het proerectiel effect van apomorfine. J. Pharmacol. Exp. Ther. 308, 330-338. Huang, PL, Dawson, TM, Bredt, DS, Snyder, SH, Fishman, MC, 1993. Gerichte verstoring van het neuronale stikstofoxidesynthasegen. Cel 75, 1273-1286. Huber, D., Veinante, P., Stoop, R., 2005. Vasopressine en oxytocine exciteren verschillende neuronale populaties in de centrale amygdala. Wetenschap 308, 245-248. Hull, EM, Warner, RK, Bazzett, TJ, Eaton, RC, Thompson, JT, 1989. De D2 / D1-verhouding in het mediale preoptische gebied beïnvloedt de copulatie van mannelijke ratten. J. Pharmacol. Exp. Ther. 251, 422-427. Hull, EM, Du, J., Lorrain, DS, Matuszewich, L., 1995. Extracellulaire dopamine in het mediale preoptische gebied: implicaties voor seksuele motivatie en hormonale controle op copulatie. J. Neurosci. 15, 7465-7471. Hull, EM, Meisel, RL, Sachs, BD, 2002. Mannelijk seksueel gedrag. In: Pfaff, DW, Arnold, AP, Etgen, AM, Fahrbach, SE, Rubin, RT (Redacteuren), Hormonen, Hersenen en Gedrag. Academic Press, New York, pp. 3-137. Hurlemann, R., Patin, A., Onur, OA, Cohen, MX, Baumgartner, T., Metzler, S., Dziobek, I., Gallinat, J., Wagner, M., Maier, W., Kendrick, KM, 2010. Oxytocine versterkt het amygdala-afhankelijke, sociaal versterkte leren en emotionele empathie bij de mens. J. Neurosci. 30, 4999-5007. Ivell, R., Russel, JA, 1995. Oxytocine: cellulaire en moleculaire benaderingen in geneeskunde en onderzoek. Vooruitgang in Experimental Medicine and Biology, vol. 395. Plenum Press, New York. Kelley, AE, Domesick, VB, 1982. De verdeling van de projectie van de hippocampusformatie naar de nucleus accumbens bij de rat: een anterograde- en retrograde-mierikswortelperoxidase-onderzoek. Neuroscience 7, 2321-2335. Kimura, Y., Naitou, Y., Wanibuchi, F., Yamaguchi, T., 2008. 5-HT (2C) -receptoractivatie is een gebruikelijk mechanisme op proerectiele effecten van apomorfine, oxytocine en melanotan-II bij ratten. E. J. Pharmacol. 589, 157-162. Kondo, Y., Sachs, BD, Sakuma, Y., 1998. Het belang van de mediale amygdala bij de erectie van rattenpenuwen opgewekt door prikkels op afstand van oestrische vrouwtjes. Behav. Brain Res. 91, 215-222. Kovacs, GL, Sarnyai, Z., Szabo, G., 1998. Oxytocine en verslaving: een beoordeling. Psychoneuroendocrinology 23, 945-962. Lee, HJ, Macbeth, AH, Pagani, JH, Scott Young 3rd, W., 2009. Oxytocine: de grote facilitator van het leven. Prog. Neurobiol. 88, 127-151. Lindvall, O., Bjorklund, A., Skagerberg, G., 1984. Selectieve istochemische demonstratie van dopamine-terminale systemen in di- en telencefalon van de rat: nieuw bewijs voor dopaminerge innervatie van nucleaire hypothalamische neurosecretoire kernen. Brain Res. 306, 19-30. Liu, YC, Salamone, JD, Sachs, BD, 1997. Verminderde seksuele respons na laesies van de paraventriculaire kern van de hypothalamus bij mannelijke ratten. Behav. Neurosci. 111, 1361-1367. Löber, S., Tschammer, N., Hübner, H., Melis, MR, Argiolas, A., Gmeiner, P., 2009. Het azuleenraamwerk als een nieuwe bioisostere: ontwerp van krachtige dopamine D4-receptorliganden die de erectie van de penis induceren. Chem. Med. Chem. 4, 325-328. McCleskey, EW, Fox, AP, Feldman, DH, Cruz, LJ, Olivera, BM, Tsien, RW, Yoshikami, D., 1987. _-Conotoxine: directe en aanhoudende blokkade van specifieke soorten calciumkanalen in neuronen, maar niet in spieren. Prot. Nat. Acad. Sci. Verenigde Staten van Amerika 84, 4327-4331. McKenna, KE, 2000. Sommige voorstellen met betrekking tot de organisatie van het centrale zenuwstelsel controle van penis erectie. Neurosci. Biobehav. Rev 24, 535-540. Marson, L., McKenna, KE, 1992. Een rol voor 5-hydroxytryptamine bij dalende remming van spinale seksuele reflexen. Exp. Brain Res. 88, 313-318. Marson, L., McKenna, KE, 1996. CNS-celgroepen die betrokken zijn bij de beheersing van de ischiocavernosus- en bulbospongiosus-spieren: een transneuronaal opsporingsonderzoek met behulp van het pseudorabies-virus. J. Comp. Neurol. 374, 161-179. Meisel, RL, Sachs, BD, 1994. De fysiologie van mannelijk seksueel gedrag. In: Knobil, E., Neil, J. (Eds.), The Physiology of Reproduction, vol. 2, tweede editie. Raven Press, New York, pp. 3-96. Melin, P., Kihlstrom, JE, 1963. Invloed van oxytocine op seksueel gedrag bij mannelijke konijnen. Endocrinologie 73, 433-435. Melis, MR, Argiolas, A., 1995a. Dopamine en seksueel gedrag. Neurosci. Biobehav. Rev 19, 19-38. Melis, MR, Argiolas, A., 1995b. Stikstofoxidedonoren induceren de erectie van de penis en gapen wanneer ze worden geïnjecteerd in het centrale zenuwstelsel van mannelijke ratten. E. J. Pharmacol. 294, 1-9. Melis, MR, Argiolas, A., 2003. Centrale oxytocinerge neurotransmissie: een medicijndoelwit voor de behandeling van psycogenic erectiestoornissen. Curr. Medicijndoelen 4, 55-66. Melis, MR, Argiolas, A., Gessa, GL, 1986. Oxytocine-geïnduceerde gapende en penis erectie: plaats van actie in de hersenen. Brain Res. 398, 259-265. Melis, MR, Argiolas, A., Gessa, GL, 1987. Apomorfine-geïnduceerde gapende en penis erectie: plaats van actie in de hersenen. Brain Res. 415, 98-104. Melis, MR, Argiolas, A., Gessa, GL, 1989a. Apomorfine verhoogt de plasma-oxytocine-spiegels bij ratten. Neurosci. Lett. 98, 351-355. Melis, MR, Argiolas, A., Gessa, GL, 1989b. Bewijs dat apomorfine de erectie en het gapen van de penis induceert door oxytocine in het centrale zenuwstelsel af te geven. E. J. Phamacol. 164, 565-570. Melis, MR, Argiolas, A., Stancampiano, R., Gessa, GL, 1990. Effect van apomorfine op oxytocineconcentraties in verschillende hersengebieden en plasma van mannelijke ratten. E. J. Pharmacol. 182, 101-107. Melis, MR, Mauri, A., Argiolas, A., 1994a. Door apomorfine en oxytocine geïnduceerde erectie van de penis en gapen in intacte en gecastreerde mannelijke ratten: effect van seksuele steroïden. Neuro-endocrinologie 59, 349-354. Melis, MR, Stancampiano, R., Argiolas, A., 1994b. Penisectie en gaping geïnduceerd door paraventriculaire NMDA-injecties worden gemedieerd door oxytocine. Pharmacol. Biochem. Behav. 48, 203-207. Melis, MR, Stancampiano, R., Argiolas, A., 1994c. Preventie door NG-nitro-l-arginine methylester van apomorfine- en oxytocine-geïnduceerde erectie en gapende penis: site van actie in de hersenen. Pharmacol. Biochem. Behav. 48, 799-804. Melis, MR, Succu, S., Argiolas, A., 1996. Dopamine-agonisten verhogen de stikstofoxideproductie in de paraventriculaire kern van de hypothalamus: correlatie met penis-erectie en gapen. E. J. Neurosci. 8, 2056-2063. Melis, MR, Succu, S., Iannucci, U., Argiolas, A., 1997. Oxytocine verhoogt de productie van stikstofmonoxide in de paraventriculaire kern van de hypothalamus: correlatie met erectie van de penis en gapen. Reg. Peptides 69, 105-112. Melis, MR, Succu, S., Mauri, A., Argiolas, A., 1998. De productie van stikstofmonoxide is verhoogd in de paraventriculaire kern van de hypothalamus van mannelijke ratten tijdens contactloze erectie en copulatie van de penis. E. J. Neurosci. 10, 1968-1974. Melis, MR, Spano, MS, Succu, S., Argiolas, A., 1999a. De oxytocine-antagonist d (CH2) 5Tyr (Me) 2-Orn8-vasotocine vermindert niet-contact penis erecties in mannelijke ratten. Neurosci. Lett. 265, 171-174. Melis, MR, Succu, S., Spano, MS, Argiolas, A., 1999b. Morfine geïnjecteerd in de paraventriculaire kern van de hypothalamus voorkomt contactloze erecties en verslechtert copulatie: betrokkenheid van stikstofmonoxide. E. J. Neurosci. 11, 1857-1864. Melis, MR, Spano, MS, Succu, S., Argiolas, A., 2000. Effect van exciterende aminozuur-, dopamine- en oxytocinereceptorantagonisten op niet-contact penis-erecties en paraventriculaire stikstofmonoxide productie bij mannelijke ratten. Behav. Neurosci. 114, 849-857. Melis, MR, Succu, S., Mascia, MS, Cortis, L., Argiolas, A., 2003. Extracellulaire dopamine neemt toe in de paraventriculaire kern van mannelijke ratten tijdens seksuele activiteit. E. J. Neurosci. 17, 1266-1272. Melis, MR, Succu, S., Mascia, MS, Argiolas, A., 2004a. Antagonisme van cannabinoïde CB1receptoren in de paraventriculaire kern van mannelijke ratten induceert penis erectie. Neurosci. Lett. 359, 17-20. Melis, MR, Succu, S., Mascia, MS, Cortis, L., Argiolas, A., 2004b. Extracellulaire excitatoire aminozuren nemen toe in de paraventriculaire nucleus van mannelijke ratten tijdens seksuele activiteit: hoofdrol van NMDA-receptoren in erectiele functie. E. J. Neurosci. 19, 2569-2575. Melis, MR, Succu, S., Mascia, MS, Argiolas, A., 2005. PD-168,077, een selectieve dopamine D4-receptoragonist, induceert penisvergroting bij injectie in de paraventriculaire kern van mannelijke ratten. Neurosci. Lett. 379, 59-62. Melis, MR, Succu, S., Mascia, MS, Sanna, F., Melis, T., Succu, S., Castelli, MP, Argiolas, A., 2006a. Door SR 141716A geïnduceerde erectie van de penis bij mannelijke ratten: betrokkenheid van paraventriculair glutaminezuur en stikstofmonoxide. Neurofarmacologie 50, 219-228. Melis, MR, Succu, S., Sanna, F., Mascia, MS, Melis, T., Enguehard-Gueiffier, C., Hubner, H., Gmenier, P., Gueiffier, A., Argiolas, A., 2006b. PIP3EA en PD168077, twee selectieve dopamine D4-receptoragonisten, induceren de erectie van de penis bij mannelijke ratten: plaats en werkingsmechanisme in de hersenen. E. J. Neurosci. 24, 2021-2030. Melis, MR, Melis, T., Cocco, C., Succu, S., Sanna, F., Pillolla, G., Boi, A., Ferri, GL, Argiolas, A., 2007. Oxytocine geïnjecteerd in het ventrale tegmentale gebied induceert penis erectie en verhoogt extracellulaire dopamine in de nucleus accumbens MR Melis, A. Argiolas / Neuroscience and Biobehavioral Reviews 35 (2011) 939-955 955 en paraventriculaire nucleus van de hypothalamus van mannelijke ratten. E. J. Neurosci. 26, 1026-1035. Melis, MR, Sanna, F., Succu, S., Zarone, P., Boi, A., Argiolas, A., 2009a. De rol van oxytocine in de anticiperende en consumerende stadia van seksueel gedrag van mannelijke ratten. In: Jastrow, H., Feuerbach, D. (Eds.), Handbook of Oxytocin Research: Synthese, opslag en vrijgeving, acties en farmaceutische vormen. Nova Publishers Inc., New York, VS, pp. 109-125. Melis, MR, Succu, S., Sanna, F., Boi, A., Argiolas, A., 2009b. Oxytocine geïnjecteerd in het ventrale subiculum of de corticulaire posterische kern van de amygdala induceert penis-erectie en verhoogt extracellulair dopamine in de nucleus accumbens van mannelijke ratten. E. J. Neurosci. 30, 1349-1357. Melis, MR, Succu, S., Cocco, C., Caboni, E., Sanna, F., Boi, A., Ferri, GL, Argiolas, A., 2010. Oxytocine induceert penis erectie wanneer geïnjecteerd in het ventrale submiculum: rol van stikstofmonoxide en glutaminezuur. Neurofarmacologie 58, 1153-1160. Moreland, RB, Nakane, M., Donnelly-Roberts, DL, Miller, LN, Chang, R., Uchic, ME, Terranova, MA, Gubbins, EJ, Helfrich, RJ, Namovic, MT, El-Kouhen, OF, Masters, JN, Brioni, JD, 2004. Vergelijkende farmacologie van humane dopamine D (2) -achtige receptor stabiele cellijnen gekoppeld aan calciumflux via Galpha (qo5). Biochem. Pharmacol. 68, 761-772. Moos, F., Freund-Mercier, MJ, Guerne, Y., Guerne, JM, Stoeckel, ME, Richard, P., 1984. Afgifte van oxytocine en vasopressine door magnocellulaire kernen in vitro: specifiek faciliterend effect van oxytocine op zijn eigen afgifte. J. Endocrinol. 102, 63-72. Murphy, MR, Seckl, JR, Burton, S., Checkley, SA, Lightman, SL, 1987. Veranderingen in de oxytocine- en vasopressinesecretie tijdens seksuele activiteit bij mannen. J. Clin. Endocrinol. Metab. 65, 738-741. Nishimori, K., Young, LJ, Guo, Q., Wang, Z., Insel, TR, Matzuk, MM, 1996. Oxytocine is vereist voor borstvoeding, maar niet essentieel voor partus of voortplantingsgedrag. Proc. Natl. Acad. Sci. Verenigde Staten van Amerika 93, 11699-11704. Patel, S., Freedman, S., Chapman, KL, Emms, F., Fletcher, AE, Knowles, M., Marwood, R., Mccallister, G., Myers, J., Curtis, J., Kulagowski, JJ, Leeson, PD, Ridgill, M., Graham, M., Matheson, S., Rathbone, D., Watt, AP, Bristow, LJ, Rupniak, NM, Baskin, E., Lynch, JJ, Ragan, CI , 1997. Biologisch profiel van L 745,870, een selectieve antagonist met hoge affiniteit voor de dopamine D4-receptor. J. Pharmacol. Exp. Ther. 283, 636-647. Pedersen, CA, Caldwell, JD, Jirikowski, GF, Insel, TR, 1992. Oxytocine in Maternal, Sexual en Social Behaviors, Annals of the New York Academy of Sciences, vol. 652. De New York Academy of Sciences, New York. Petrovic, P., Kalisch, R., Singer, T., Dolan, RJ, 2008. Oxytocine verzwakt affectieve evaluaties van geconditioneerde gezichten en amygdala-activiteit. J. Neurosci. 28, 6607-6615. Pfaus, JG, Everitt, BJ, 1995. De psychofarmacologie van seksueel gedrag. In: Knobil, FE, Kupfer, DJ (Eds.), Psychopharmacology: the Fourth Generation of Progress. Raven Press, New York, pp. 742-758. Rajfer, J., Aronson, WJ, Bush, PA, Dorey, FJ, Ignarro, LJ, 1992. Stikstofmonoxide als een bemiddelaar van relaxatie van het corpus cavernosum als reactie op niet-adrenerge, niet-cholinergische neurotransmissie. N. Engl. J. Med. 326, 90-94. Roeling, TAP, Van Erp, AMM, Meelis, W., Kruk, MR, Veening, JG, 1991. Gedragseffecten van NMDA geïnjecteerd in de hypothalamische paraventriculaire kern van de rat. Brain Res. 550, 220-224. Sachs, BD, 1997. Erectie opgeroepen bij mannelijke ratten door luchtgeur van oestrische vrouwtjes. Physiol. Behav. 62, 921-924. Sachs, BD, 2000. Contextuele benaderingen van de fysiologie en classificatie van erectiele functie, erectiestoornissen en seksuele opwinding. Neurosci. Biobehav. Rev 24, 541-560. Sachs, BD, 2007. Een contextuele definitie van mannelijke seksuele opwinding. Horm. Behav. 51, 569-578. Sanchez, F., Alonso, JR, Arevalo, R., Blanco, E., Aijon, J., Vazquez, R., 1994. Co-existentie van NADPH-diaforase met vasopressine en oxytocine in de hypothalamische magnocellulaire neurosecretoire kernen van de rat. Cell Tissue Res. 276, 31-34. Sanna, F., Succu, S., Boi, A., Melis, MR, Argiolas, A., 2009. Phosphodiesterase type 5-remmers vergemakkelijken contactloze erecties bij mannelijke ratten: plaats van actie in de hersenen en werkingsmechanisme. J. Sex. Med. 6, 2680-2689. Saphier, D., Feldman, S., 1987. Effecten van septum- en hippocampale stimuli op paraventriculaire nucleusneuronen. Neuroscience 20, 749-755. Sato-Suzuki, I., Kita, I., Oguri, M., Arita, H., 1998. Gestereotypeerde gapende responsen geïnduceerd door elektrische en chemische stimulatie van de paraventriculaire nucleus van de rat. J. Neurophysiol. 80, 2765-2775. Schuman, EM, Madison, DV, 1994. Stikstofmonoxide en synaptische functie. Ann. Rev Neurosci. 17, 153-183. Snyder, SH, 1992. Stikstofmonoxide: eerst in een nieuwe klasse van neurotransmitters? Wetenschap 254, 494-496. Sofroniew, MV, 1983. Vasopressine en oxytocine in de hersenen en het ruggenmerg van zoogdieren. Trends Neurosci. 6, 467-472. Sokoloff, P., Schwartz, JC, 1995. Nieuwe dopamine-receptoren een half decennium later. Trends Pharmacol. Sci. 16, 270-275. Southam, E., Garthwaite, J., 1993. De stikstofmonoxide-cyclische GMP-signaalroute in de hersenen van de rat. Neurofarmacologie 32, 1267-1277. Stancampiano, R., Melis, MR, Argiolas, A., 1994. Penisectie en gapen geïnduceerd door 5-HT1c-agonisten bij mannelijke ratten: verband met dopaminerge en oxytocinerge transmissie. E. J. Pharmacol. 261, 149-155. Succu, S., Mascia, MS, Sanna, F., Melis, T., Argiolas, A., Melis, MR, 2006. De cannabinoïde CB1-receptorantagonist SR 141716A induceert de erectie van de penis door het verhogen van extracellulair glutaminezuur in de paraventriculaire kern van mannelijke ratten. Behav. Brain Res. 169, 274-281. Succu, S., Sanna, F., Melis, T., Boi, A., Argiolas, A., Melis, MR, 2007. Stimulatie van dopamine-receptoren in de paraventriculaire kern van de hypothalamus van mannelijke ratten induceert penis-erectie en verhoogt extracellulaire dopamine in de nucleus accumbens: betrokkenheid van centrale oxytocine. Neurofarmacologie 52, 1034-1043. Succu, S., Sanna, F., Cocco, C., Melis, T., Boi, A., Ferri, GL, Argiolas, A., Melis, MR, 2008. Oxytocine induceert peniserectie wanneer geïnjecteerd in het ventrale tegmentale gebied van mannelijke ratten: rol van stikstofmonoxide en cyclische GMP. E. J. Neurosci. 28, 813-821. Tanda, G., Pontieri, FE, Di Chiara, G., 1997. Cannabinoïden en heroïneactivering van mesolimbische dopaminetransmissie door een gemeenschappelijk mu1 opioïdreceptormechanisme. Wetenschap 276, 2048-2050. Tang, Y., Rampin, O., Calas, A., Facchinetti, P., Giuliano, F., 1998. Oxytocinerge en serotoninergische innervatie van geïdentificeerde lumbosacrale kernen die de erectie van de penis in de mannelijke rat regelen. Neuroscience 82, 241-254. Theodosis, DT, 1985. Oxytocine-immunoreactieve terminale synaps op oxytocine neuronen in de supraoptische kernen. Natuur (Londen) 313, 682-684. Tindall, JS, 1974. Stimuli die de afgifte van oxytocine veroorzaken. In: Geiger, SR, Knobil, E., Sawyer, WH, Greef, R., Astwood, EB (Red.), Handbook of Physiology. Sekte. 7, Endocrinology, vol. IV. American Physiology Society, Washington DC, pp. 257-267. Torres, G., Lee, S., Rivier, C., 1993. Ontogenie van de hypothalamische stikstofmonoxide synthase van de rat en colocalisatie met neuropeptiden. Mol. Cel Neurosci. 4, 155-163. Uhl-Bronner, S., Waltisperger, E., Martinez-Lorenzana, G., Condes, LM, Freund-Mercier, MJ, 2005. Seksueel dimorfe expressie van oxytocine-bindingsplaatsen in voorhersenen en ruggenmerg van de rat. Neuroscience 135, 147-154. Vaccari, C., Lolait, SJ, Ostrowski, NL, 1998. Vergelijkende verdeling van vasopressine V1b en oxytocine receptor messenger ribonucleïnezuren in de hersenen. Endocrinologie 139, 5015-5033. Van Den Pol, A., 1991. Glutamaat- en aspartaat-immunoreactiviteit in hypothalamische presynaptische axonen. J. Neurosci. 11, 2087-2101. Veronneau-Longueville, F., Rampin, O., Freund-Mercier, MJ, Tang, Y., Calas, A., Marson, L., McKenna, KE, Stoeckel, ME, Benoit, G., Giuliano, F. , 1999. Oxytocinerge innervatie van autonome kernen die de erectie van de penis in de rat beheersen. Neuroscience 93, 1437-1447. Vincent, SR, Kimura, H., 1992. Histochemisch in kaart brengen van stikstofoxidesynthase in de hersenen van de rat. Neuroscience 46, 755-784. Wagner, CK, Clemens, LG, 1993. Neurofysine-bevattende route van de paraventriculaire kern van de hypothalamus naar een seksueel dimorfe motorische kern in het lumbale ruggenmerg. J. Comp. Neurol. 336, 106-116. Winslow, JT, Insel, TR, 1991. Sociale status in paren van mannelijke eekhoornapen bepaalt de gedragsreactie op centrale oxytocinetoediening. J. Neurosci. 11, 2032-2038. Wise, RA, Rompre, P.-P., 1989. Hersenen dopamine en beloning. Ann. Rev Psychol. 40, 191-225. Witt, DM, Insel, TR, 1994. Mannelijk seksueel gedrag activeert c-fos-achtig eiwit in oxytocine-neuronen in de paraventriculaire kern van de hypothalamus. J. Neuroendocrinol. 6, 13-18. Witter, MP, 2006. Verbindingen van het subiculum van de rat: topografie in relatie tot kolomvormige en laminaire organisatie. Gedrag Brain Res. 174, 251-264. Woodruff, GN, Foster, AC, Gill, R., Kemp, JA, Wong, EH, Iversen, LL, 1987. De interactie tussen MK-801 en receptoren voor N-methyl-d-aspartaat: functionele gevolgen. Neurofarmacologie 26, 903-909. Yamashita, H., Shigeru, O., Inenaga, K., Kasai, M., Uesugi, S., Kannan, H., Kaneko, T., 1987. Oxytocine exciteert in plaats daarvan vermoedelijke oxytocine-neuronen in de supraoptische nucleus van de rat. Brain Res. 416, 364-368. Yells, DP, Hendricks, SE, Prendergast, MA, 1992. Laesies van de nucleus paragigantocellularis: effecten op het paargedrag bij mannelijke ratten. Brain Res. 596, 73-79. Young, WS, Shepard, E., Amico, J., Hennighausen, L., LaMarca, ME, McKinney, C., Ginns, EI, 1996. Een tekort aan oxytocine van de muis voorkomt uitwerpsel van de melk, maar geen vruchtbaarheid of bevalling. J. Neuroendocrinol. 8, 847-854. Zahran, AR, Vachon, P., Courtois, F., Carrier, S., 2000. Verhoogde intracaverneuze penisdruk na injecties van exciterende aminozuurreceptoragonisten in de hypothalamische paraventriculaire kern van verdoofde ratten. J. Urol. 164, 1793-1797.