 Fabrizio Sanna1*,
 Jessica Bratzu1,
 Maria A. Piludu2,
 Maria G. Corda2,
 Maria R. Melis1,
 Osvaldo Giorgi2 og
 Antonio Argiolas1,3
- 1Institutt for biomedisinske fag, Seksjon for nevrovitenskap og klinisk farmakologi, og Senter for Excellence Neurobiology, University of Cagliari, Cagliari, Italia
- 2Institutt for livs- og miljøvitenskap, Seksjon for farmasøytisk, farmakologisk og nutraceutisk vitenskap, Universitetet i Cagliari, Cagliari, Italia
- 3Institutt for nevrovitenskap, Nasjonalt forskningsråd, Cagliari-delen, Cittadella Universitaria, Cagliari, Italia
Romerske høye (RHA) og utilsiktede rotter (RLA), som avviger for en henholdsvis rask vs. dårlig oppkjøp av den aktive unngåsresponsen i skyttelboksen, viser forskjeller i seksuell aktivitet når de blir tilstedeværelse av et seksuelt mottakelig kvinnelig rotte. Faktisk RHA-rotter viser høyere nivåer av seksuell motivasjon og copulatorisk ytelse enn RLA-rotter, som vedvarer også etter gjentatt seksuell aktivitet. Disse forskjellene har vært korrelert med en høyere tone i mesolimbisk dopaminergisk system av RHA-rotter vs RLA-rotter, avslørt av den høyere økningen av dopamin funnet i dialysatet oppnådd fra nukleinsammenhengene av RHA enn RLA-rotter under seksuell aktivitet. Dette arbeidet viser at ekstracellulær dopamin og noradrenalin (NA) også øker dialysatet fra den mediale prefrontale cortexen (mPFC) av mannlige RHA- og RLA-rotter satt i nærvær av en utilgjengelig hunrot og mer markant under direkte seksuell interaksjon. Slike økninger i dopamin (og hovedmetabolitten 3,4-dihydroksyfenyleddiksyre, DOPAC) og NA ble funnet hos både seksuelt naive og erfarne dyr, men de var høyere: (i) i RHA enn hos RLA-rotter; og (ii) hos seksuelt erfarne RHA- og RLA-rotter enn i deres naive motparter. Endelig skjedde forskjellene i dopamin og NA i mPFC samtidig med dem i seksuell aktivitet, da RHA-rotter viste høyere nivåer av seksuell motivasjon og kopulatorisk ytelse enn RLA-rotter i både seksuelt naive og erfarne forhold. Disse resultatene antyder at en høyere dopaminerge tone også forekommer i mPFC sammen med en økt noradrenerg tone som kan være involvert i de forskjellige kopulatoriske mønstrene som finnes i RHA og RLA rotter, som foreslått for mesolimbic dopaminerge systemet.
Introduksjon
De romerske høye (RHA) og lav-unnvikende (RLA) utavkomne rotte linjer, opprinnelig valgt for henholdsvis hurtig versus dårlig oppkjøp av den aktive unngåringsresponsen i skyttelboksen (Bignami, 1965; Broadhurst og Bignami, 1965; Driscoll og Bättig, 1982; Fernández-Teruel et al., 2002; Giorgi et al., 2007) utviser signifikante forskjeller i seksuell aktivitet når de legges i nærvær av en seksuelt mottakelig kvinnelig rotte. Faktisk viser RHA-rotter høyere nivåer av seksuell motivasjon enn RLA-rotter, som avslørt av det høyere antallet av ikke-berørte penile ereksjoner som vistes av disse rotter når de er satt i nærvær av en utilgjengelig mottakelig kvinne, og bedre kopulatoriske forestillinger enn RLA-rotter, som avslørt av de betydelige forskjellene i mange copulatoriske parametere funnet hovedsakelig i den første kopulatoriske testen mellom de to rotte linjene, men også etter fem kopulerende tester, selv om dempet (Sanna et al., 2014a). Blant de mest uttalt forskjellene som finnes mellom RHA og RLA-rotter er prosentandelen av rotter som initierer montering og intromitting og som ejakulerer i den første kopulatoriske testen, henholdsvis 80% av RHA-rotter mot 40% av RLA-rotterSanna et al., 2014a). En stor del av eksperimentelle bevis tyder på at en funksjonelt forskjellig dopaminerge tone er involvert i kopulasjonsforskjellene mellom RHA og RLA-rotter. Faktisk har de forskjellige kopulatoriske mønstrene av RHA og RLA-rotter vist seg å være annerledes modifisert av apomorfin, en blandet D1 / D2 dopaminreseptoragonist administrert ved doser som letter seksuell oppførsel, og av haloperidol, en D2 dopaminreseptorantagonist administrert ved lave doser som hemmer seksuell oppførsel (Sanna et al., 2014b). Følgelig har RLA-rotter blitt funnet å være mer følsomme for tilrettelegging og inhibering av seksuell atferd indusert av henholdsvis apomorfin og haloperidol, som vist ved de større modifikasjoner indusert av de to legemidlene, hovedsakelig ved administrering ved de lavere doser i forskjellige kopulatoriske parametere i RLA-rotter med hensyn til RHA-rotter (Sanna et al., 2014b). Kanskje viktigere for denne studien, er de forskjellige kopulatoriske mønstrene av RHA og RLA rotter også relatert til forskjeller i aktiviteten til de mesolimbiske dopaminerge nevronene, hvis aktivitet er kjent for å øke under seksuell oppførsel (Pfaus et al., 1990; Pleim et al., 1990; Pfaus og Phillips, 1991; Damsma et al., 1992; Wenkstern et al., 1993; Balfour et al., 2004; Pitchers et al., 2010, 2013; Beloate et al., 2016). Faktisk, til tross for at seksuelt naive og seksuelt erfarne RHA- og RLA-rotter har lignende basale verdier av ekstracellulær dopamin i dialysatet fra nucleus accumbens, er konsentrasjonene av ekstracellulær dopamin og 3,4-dihydroksyfenyleddiksyre (DOPAC, en av hovedmetabolittene ), har blitt funnet å øke differensielt i dialysatene oppnådd fra nukleinsammenhengskallen av naive og seksuelt erfarne RHA- og RLA-rotter i både de foregående og forbruksfasene av seksuell oppførsel. Ovennevnte forskjeller var mer markert mellom seksuelt naive RHA- og RLA-rotter, men fortsatte mellom seksuelt erfarne RHA- og RLA-rotter, selv om de pleide å minske i disse rotter, som funnet med forskjellene i seksuell oppførsel (Sanna et al., 2015).
Den funksjonelle rollen til økningen i dopaminerg aktivitet i nucleus accumbens sett under seksuell aktivitet (enten i appetittfasen og konsummatorifasen av seksuell atferd) er fortsatt omdiskutert, så vel som den som ses under mating, som i likhet med seksuell aktivitet har en sterk motivasjonsvalens. Selv om dopamin i nucleus accumbens er involvert i motivasjon og mesolimbiske dopaminerge nevroner vanligvis omtales som givende nevroner, støtter nyere studier i løpet av de siste 15 årene hypotesen om at mesolimbisk dopamin ikke er involvert i det primære uttrykket av motivert eller givende atferd, men snarere i læring og hukommelse av stimulus-belønningsassosiasjoner ( Agmo et al., 1995 ; Berridge og Robinson, 1998 ; Ikemoto og Panksepp, 1999 ; Pitchers et al., 2013 , 2014 ; Beloate et al., 2016 ; Salamone et al., 2016 ). I tråd med denne hypotesen har det nylig blitt funnet at blokaden av dopaminreseptorer i nucleus accumbens eller inaktivering av dopaminerge nevroner i det ventrale tegmentale området ikke kan endre uttrykket av appetittvekkende og konsummative aspekter ved kopulatorisk atferd hos hannrotter ( Pitchers et al., 2013 , 2014 ; Beloate et al., 2016 ).
Imidlertid kan ikke en rolle av andre hjerneområder som inneholder dopamin i ovennevnte forskjeller i seksuell oppførsel mellom RHA og RLA-rotter utelukkes. Følgelig er det velkjent at dopamin utøver tilretteleggende virkninger på de forventende og konsumtive faser av seksuell oppførsel hos forsøksdyr og også hos mennesker, ikke bare i kjernen accumbens (Everitt, 1990; Pfaus et al., 1990; Hull et al., 1991; Pfaus og Everitt, 1995; Melis og Argiolas, 2011), men også i andre hjerneområder, som det mediale preoptiske området, hypotalamuset og dets kjerner (dvs. paraventrikulær kjernen (PVN); Pfaus og Phillips, 1991; Argiolas og Melis, 1995, 2005, 2013; Hull et al., 1995, 1999; Melis og Argiolas, 1995; Melis et al., 2003; Succu et al., 2007; Pfaus, 2010). Et annet område som inneholder dopamin og kan spille en rolle i seksuell oppførsel er den mediale prefrontale cortexen (mPFC; Fernández-Guasti et al., 1994; Agmo og Villalpando, 1995; Agmo et al., 1995; Hernández-Gonzáles et al., 1998, 2007; Kakeyama et al., 2003; Balfour et al., 2006; Afonso et al., 2007; Davis et al., 2010; Febo, 2011). Faktisk finnes i dette hjerneområdet nerveenden av mesokortiske dopaminneuroner, med deres cellelegemer lokalisert i det ventrale tegmentale området som mesolimbiske dopaminneuroner. Når det gjelder kjernen accumbens, er den nøyaktige rollen i dette hjerneområdet i seksuell oppførsel langt fra å være klar. Faktisk finnes lesjoner av mPFC vanligvis ikke i stand til å endre seksuell oppførsel av hannrotter med en seksuelt mottakelig kvinne (Fernández-Guasti et al., 1994; Agmo og Villalpando, 1995; Agmo et al., 1995; Hernández-Gonzáles et al., 1998, 2007; Kakeyama et al., 2003; Balfour et al., 2006; Afonso et al., 2007), heller ikke uttrykket av betinget stedsperspektiv for seksuell belønning (Davis et al., 2010). Imidlertid ble mPFC-lesjoner, som ikke endret utseendet på konditionert stedpreferanse for seksuell belønning, avskaffet i de samme dyrene muligheten til å danne betinget aversjon mot seksuell aktivitet når de er parret med aversive stimuli (Davis et al., 2010) og selektiv cellefire under nærmer seg atferd av en mannlig rotte mot en utilgjengelig seksuelt mottakelig kvinne har blitt målt i mPFC av hannrotter (Febo, 2011). Disse funnene førte til at mPFC-aktivering under seksuell adferd spiller en rolle i integrering av ekstern og intern informasjon for utførelse og kontroll av målrettet adferd snarere enn i uttrykk for medfødte responser på naturlige forsterkere (se Goto and Grace, 2005). Følgelig er mPFC sammen med kjernen accumbens en del av et komplekst nevrale system involvert i moduleringen av motivert atferd (målrettet oppførsel) som krever integrasjon av kognitiv informasjon fra mPFC, emosjonell informasjon fra amygdala og kontekst- relatert informasjon fra hippocampus, i kjernen accumbens (Goto and Grace, 2005).
Eksperimentelle bevis tyder på at dopaminfrigjøring i mPFC er involvert i den adaptive reguleringen av motivert atferd, og en deregulering av disse mekanismene antas å spille en rolle i patologiske eller maladaptive tilstander, som psykiatriske lidelser som schizofreni, ADHD, depresjon ( Dunlop og Nemeroff, 2007 ; Masana et al., 2011 ), eller rusmisbruk og spilleatferd ( Everitt og Robbins, 2005 ). Interessant nok kan aktiviteten til dopamin som frigjøres i mPFC påvirkes av noradrenalin (NA), som er tilstede i mPFC i høyere nivåer enn dopamin, og spesielt av NA-transportøren (NET), som ikke bare er mer rikelig enn dopamintransportøren (DAT) i mPFC ( Carboni et al., 1990 , 2006 ; Gresch et al., 1995 ; Westernik et al., 1998 ), men som også viser en affinitet for dopamin som er enda høyere enn for NA ( Horn, 1973 ). Siden dopamin og NA ofte samarbeider i mange mPFC-funksjoner, fra arbeidshukommelse og dannelse og skifting av oppmerksomhetssett til reverseringslæring, responshemming og respons på stress (se Robbins og Arnsten, 2009 ), øker dette muligheten for at dopamin, alene eller sammen med NA, i mPFC også kan spille en rolle i atferdsforskjellene mellom RHA- og RLA-rotter, inkludert de som finnes i seksuell atferd.
For å teste denne hypotesen ble aktiviteten av det mesokortiske dopaminerge systemet og det noradrenerge systemet i mPFC studert i de to RHA- og RLA-rotte linjene ved hjelp av intracerebral mikrodialyse. Kort fortalt ble dopamin (og dets hovedmetabolitt DOPAC) og NA målt i dialysater oppnådd fra de prelimbiske (PrL) og infralimbiske (IL) -kamrene i mPFC av seksuelt naivt (f.eks. Aldri utsatt for en mottakelig kvinne) og seksuelt erfaren RHA og RLA-rotter (f.eks. Som gjennomgikk fem foreløpige kopieringstester og viser konstante nivåer av kopulerende aktivitet) når de satt i nærvær av en utilgjengelig mottakelig kvinne og under direkte seksuell interaksjon ved høytrykksvæskekromatografi kombinert med elektrokjemisk deteksjon (HPLC-ECD).
Materialer og metoder
dyr
Utavlede RHA- og RLA-hannrotter ( N = 30 for hver linje, som veide ≈300 g ved begynnelsen av det eksperimentelle arbeidet) kom alle fra kolonien som ble grunnlagt i 1998 ved Universitetet i Cagliari, Italia ( Giorgi et al., 2007 ). Prosedyrene som brukes for selektiv avl av den sardinske kolonien er allerede beskrevet i detalj ( Giorgi et al., 2005 ).
Ovariektomiserte stimulus SD hunnrotter (250–300 g ved starten av det eksperimentelle arbeidet) som ble brukt i alle eksperimentene, ble innhentet fra Envigo (San Pietro al Natisone, Italia). Dyrene ble akklimatisert fire per bur (38 cm × 60 cm × 20 cm) til boligfasilitetene til Institutt for biomedisinske vitenskaper ved Universitetet i Cagliari i minst 10 dager før eksperimentstart, ved 24 °C, fuktighet 60 %, reversert 12-timers lys/mørke-syklus (lyset slukket fra 08:00 til 20:00), vann og standard laboratoriefôr ad libitum . Dyrene ble håndtert daglig i 1–2 minutter gjennom hele tilvenningsperioden for å begrense manipulasjonsstress under eksperimentene. I tillegg var kontakten med vedlikeholdspersonellet i dyrehuset begrenset til én enkelt ledsager, og sengetøyet i burene ble aldri skiftet verken dagen før eller på eksperimentdagen. Alle forsøkene ble utført mellom kl. 10.00 og 18.00. Denne studien ble utført i samsvar med anbefalingene i retningslinjene fra De europeiske fellesskap, direktiv av 22. september 2010 (2010/63/EU) og italiensk lovgivning (DL 4. mars 2014, nr. 26). Protokollen ble godkjent av den etiske komiteen for dyreforsøk ved Universitetet i Cagliari (autorisasjon nr. 361/2016-PR, 8. april 2016 til FS).
Eksperimentelle grupper
Seksuelt naive og seksuelt erfarne hannrotter av typen RHA og RLA ble brukt. Seksuelt naive rotter var rotter som aldri hadde blitt eksponert for en seksuelt mottakelig hunnrotte med ovariektomi og østradiol + progesteron-primet rotte. Seksuelt erfarne rotter var rotter som allerede hadde gjennomgått fem påfølgende kopulasjonstester på 60 minutter med 3 dagers intervaller med en mottakelig hunnrotte ( Sanna et al., 2014a , b ). Hunnene ble brakt i brunst ved behandling med subkutant østradiolbenzoat (200 μg/rotte i peanøttolje) og progesteron (0.5 mg/rotte i peanøttolje), henholdsvis 48 timer og 6 timer før kopulasjonstestene. Brunst ble verifisert ved May-Grunwald-Giemsa-farging og mikroskopisk undersøkelse av vaginale utstryk 1 time før forsøkene. I samsvar med tidligere studier ( Sanna et al., 2014a , b , 2015 ) ble fem innledende kopulasjonstester funnet å være tilstrekkelige til at hann-romerske rotter av begge linjer viste konstante nivåer av kopulerende aktivitet: f.eks. oppfylte seksuelt erfarne RHA- og RLA-rotter kriteriet om minst én ejakulasjon oppnådd i hver av de to siste testene (én RHA-rotte og to RLA-rotter som ikke oppfylte dette kriteriet, ble forkastet i denne fasen). To dager etter disse innledende kopulasjonstestene gjennomgikk seksuelt erfarne romerske rotter stereotaksisk kirurgi for implantasjon av en mikrodialyseprobe i mPFC som beskrevet nedenfor ( Sanna et al., 2015 ).
Mikrodialyse i mPFC under seksuell adferd
Dagen før mikrodialyse ble seksuelt naive eller erfarne RHA- og RLA-rotter plassert i et stereotaksisk apparat (Stoelting Co., Wood Dale, IL, USA) under isoflurananestesi (1.5 %–2 %; Harvard Apparatus, Holliston, MA, USA) og implantert med en vertikal hjemmelaget mikrodialysesonde (dialysemembran ≈3 mm fri overflate; Melis et al., 2003 ), og rettet ensidig mot mPFC-, PrL- og IL-kompartmentene (koordinater: 3.0 mm anteriort og 0.7 mm lateralt til bregma, og 5.5 mm ventralt til dura; Paxinos og Watson, 2004 ). På forsøksdagen ble dyrene i løpet av den mørke fasen av syklusen overført til paringsburet (45 cm × 30 cm × 24 cm), som var plassert i et lydisolert rom opplyst av et svakt rødt lys, og som inneholdt et annet lite pleksiglassbur (15 cm × 15 cm × 15 cm) med 25 hull (Ø 2 mm) i de vertikale veggene for å tillate visuell, olfaktorisk og akustisk, men ikke direkte interaksjon. Etter en tilvenningsperiode på 2 timer ble mikrodialysesonden koblet til en CMA/100 mikroinfusjonspumpe (Harvard Apparatus, Holliston, MA, USA) med polyetylenslange og perfusert med en Ringers-løsning (147 mM NaCl, 3 mM KCl og 1.2 mM CaCl2 , pH 6.5 ), med en strømningshastighet på 2.5 μl/min. Etter en ekvilibreringsperiode på 2 timer av perfusjonsmediet med den ekstracellulære væsken, ble dialysalikvoter på 37.5 μL samlet hvert 15. minutt under eksperimentet i iskjølte polyetylenrør for måling av konsentrasjonen av dopamin, DOPAC og NA, som beskrevet nedenfor. Etter innsamling av minst fire dialysalikvoter ble en reseptiv hunnrotte introdusert i det lille buret som var plassert inne i paringsburet i 30 minutter. I løpet av disse 30 minuttene ble to andre dialysalikvoter samlet inn. Under disse forholdene kan ikke hannrotter samhandle direkte med hunnen, men viser ikke-kontaktereksjoner (se nedenfor). Etter denne perioden ble det lille buret fjernet, kopulasjon ble tillatt i 75 minutter, og fem andre dialysalikvoter ble samlet inn. På slutten av denne perioden ble hunnen fjernet fra paringsburet, og en ytterligere dialysatalikvot ble samlet inn ( Pfaus og Everitt, 1995 ; Melis et al., 2003 ; Sanna et al., 2015 ). Seksuelle parametere relatert til forventnings- og konsummatoire faser av seksuell atferd ble registrert gjennom hele eksperimentet (se nedenfor).
Seksuell adferd
Flere parametere for seksuell motivasjon og kopulatorisk ytelse relatert til de forventningsfulle og konsumatoriske fasene av seksuell atferd ble registrert gjennom hele eksperimentet av en observatør som ikke var klar over de spesifikke eksperimentelle forholdene, f.eks. som ikke kjente linjen og nivået av seksuell erfaring hos dyrene som ble brukt i det eksperimentet (se nedenfor). Kort fortalt ble latensen til den første ikke-kontakt ereksjonen (NCPEL, tidsbestemt fra introduksjonen av den reseptive hunnen i det indre lille buret) og deres frekvens (NCPEF, antall ikke-kontakt penis ereksjoner som oppstår i perioden hunnen er tilstede i det indre buret) registrert. Disse feromonmedierte penis ereksjonene, som oppstår hos seksuelt potente hannrotter i nærvær av en utilgjengelig reseptiv hunn, regnes som en viktig indeks for seksuell opphisselse ( Sachs et al., 1994 ; Sachs, 2000 ; Melis et al., 2003 ). Når seksuell interaksjon var tillatt, f.eks. under kopulasjon, ble latens til montering og intromittering (ML og IL, tidsbestemt fra fjerning av det indre lille buret til henholdsvis første montering eller første intromittering); hyppighet av montering og intromittering (MF og IF, antall monteringer og intromitteringer, henholdsvis, i den første serien med kopulerende aktivitet og i løpet av hele kopulasjonsperioden); latens til ejakulasjon (EL, tidsbestemt fra første intromittering i den første serien til ejakulasjon); hyppighet av ejakulasjon (EF, totalt antall ejakulasjoner under kopulasjonstesten) og post-ejakulasjonsintervall (PEI, tidsbestemt fra første ejakulasjon til neste intromittering) registrert. Videre ble kopulatorisk effekt (CE; antall intromisjoner i en gitt serie delt på summen av antall monteringer og intromisjoner i samme serie) og inter-intromisjonsintervall (III; forholdet mellom ejakulasjonslatensen i en gitt serie og antall intromisjoner i den serien) også beregnet for den første serien med kopulatorisk aktivitet ( Sachs og Barfield, 1976 ; Meisel og Sachs, 1994 ; Melis et al., 2003 ; Sanna et al., 2014a , b , 2015 ).
Bestemmelse av Dopamin, DOPAC og Noradrenalin Konsentrasjoner i Dialysatet fra MPFC
Dopamin-, DOPAC- og NA-konsentrasjoner ble målt i 20 μL av den samme dialysataliquoten fra mPFC ved hjelp av høytrykksvæskekromatografi (HPLC) koblet til elektrokjemisk deteksjon ved bruk av en 4011 dobbeltcelle (Coulochem II, ESA, Cambridge, MA, USA) som allerede beskrevet ( Melis et al., 2003 ). Deteksjon ble utført i reduksjonsmodus ved +350 og −180 mV. HPLC-en ble utstyrt med en Supelcosil C18-kolonne (7.5 cm × 3.0 mm id, 3 μm partikkelstørrelse; Supelco, Supelchem, Milano, Italia), eluert med 0.06 M sitrat/acetat pH 4.2, inneholdende metanol 20 % v/v, 0.1 mM EDTA, 1 μM trietylamin og 0.03 mM natriumdodecylsulfat som en mobil fase, med en strømningshastighet på 0.6 ml/min og romtemperatur. Analysens sensitivitet var 0.125 pg for dopamin, 0.1 pg for DOPAC og 0.2 pg for NA.
histologi
Ved slutten av forsøkene ble rottene avlivet ved halshugging, hjernene umiddelbart fjernet fra hodeskallen og senket i 4 % vandig formaldehyd i 12–15 dager. Etter denne perioden ble 40 μm koronale hjernesnitt preparert med en frysemikrotom, farget med nøytralrødt og inspisert på et fasekontrastmikroskop. Posisjonen til probespissen ble deretter lokalisert i mPFC ved å følge probens bane gjennom en serie hjernesnitt (se figur 1 ). Bare rotter som hadde den aktive delen av dialyseringsmembranen riktig plassert i PrL- og IL-rommene i mPFC ble vurdert for den statistiske evalueringen av resultatene (én rotte fra hver forsøksgruppe ble kastet i denne fasen).
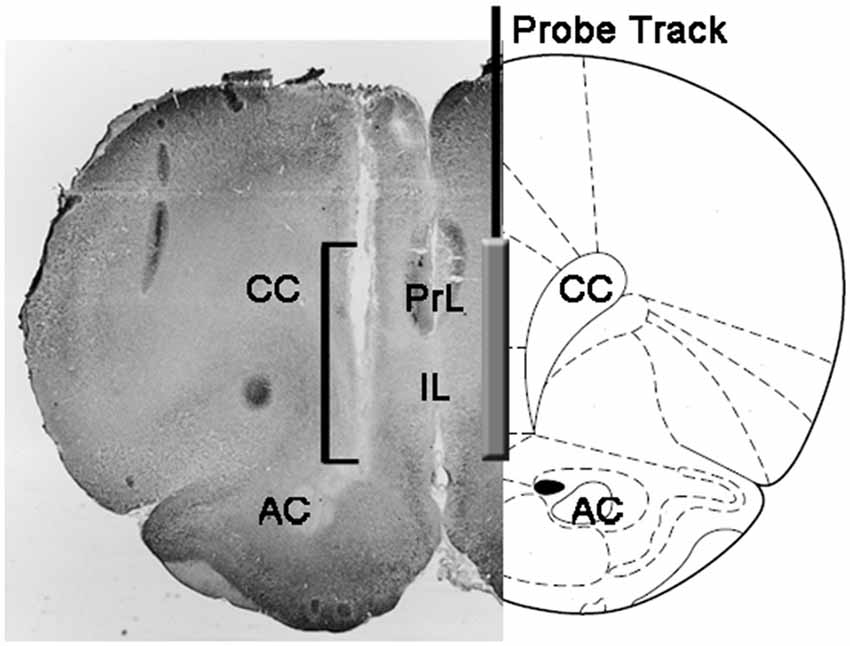 Figur 1. Skjematisk fremstilling av en koronal del av rottehjernen som viser sporet av mikrodialysesonden i PrL- og IL-delene av den mediale prefrontale cortexen (mPFC; Paxinos og Watson, 2004). Firkantbraketten i mikrofotografiet indikerer delen av den nøytrale rødfargede delen som viser den aktive delen av dialysemembranen til mikrodialysesonden. Forkortelser: PrL, prelimbic område; IL, infralimbic område; AC, anterior commissura; CC, corpus callosum.
Statistikk
Statistiske analyser av biokjemisk (dopamin, DOPAC og NA) og atferdsdata (NCPEL og NCPEF, ML, IL og EL, MF, IF og EF, og PEI) ble utført enten med alle eksperimentelle emner (som tradisjonelt gjort i studier av hannrotter kopulatorisk oppførsel) eller unntatt de fagene som ikke kopierte til utløsning i mikrodialyseprøven. I det første tilfellet, da alle dyrene ble tatt med i analysene, ble dyr som ikke viste NCPE innen den tid kvinnen var utilgjengelig eller ikke montert eller introdusert eller ejakulert med den tilgjengelige kvinnen, tildelt de respektive fullverdiene: 1800 s hvis Han viste ikke NCPE i 30-minen der kvinnen var utilgjengelig; 900 s for ML og IL hvis mannen ikke monterte eller introduserte med den tilgjengelige kvinnelige; 1800 s for EL hvis mannen ikke nådde ejakulasjon og 600 s for PEI dersom hanen ikke introduserte etter den første utløsning. I andre tilfelle ble dyrene som ikke kopierte til utløsning, ekskludert fra analysene. Dette ble gjort for å vurdere om forskjellene i seksuell oppførsel kan være korrelert med forskjeller i konsentrasjoner av ekstracellulær dopamin, DOPAC og NA i mPFC av romerske rotte linjer i de to faser av seksuell aktivitet som utelukker mulige forvirrende forstyrrelser på grunn av inkluderingen av emner som ikke viste seksuell oppførsel ved å tildele dem faste verdier for de analyserte seksuelle parametrene.
Flere statistiske analyser ble utført med ANOVA-er for å oppdage og bedre karakterisere mulige forskjeller mellom de brukte eksperimentelle forholdene. Før ANOVA-er ble utført, ble datasettene for hver av de forskjellige eksperimentelle variablene inspisert for homogenitet i variansene blant de fire eksperimentelle gruppene (gjort med alle dyr eller med rotter som kun kopulerte til ejakulasjon) med Bartletts eller Levines test avhengig av tilfellet. Når signifikante forskjeller i varians ble funnet, ble datasettene logaritmetransformert (dvs. eksperimentelle Y-verdier endret til Log Y-verdier), kontrollert på nytt for homogenitet i variansene og deretter analysert med ANOVA-er. Kort fortalt ble atferdsparametre innhentet før (f.eks. med den utilgjengelige hunnen) og under den første serien med kopulatorisk aktivitet (fra første montering/intromisjon til første montering/intromisjon etter første ejakulasjon) hos naive og seksuelt erfarne hannlige RHA- og RLA-rotter under mikrodialyse analysert ved toveis ANOVA-er, ved å bruke rottelinjen og det seksuelle erfaringsnivået mellom forsøkspersonene (gjennomsnittsverdiene for atferdsparametrene er rapportert i tabell 1 og F- verdiene og signifikansnivåene for ANOVA-analyser i tabell 2 ).
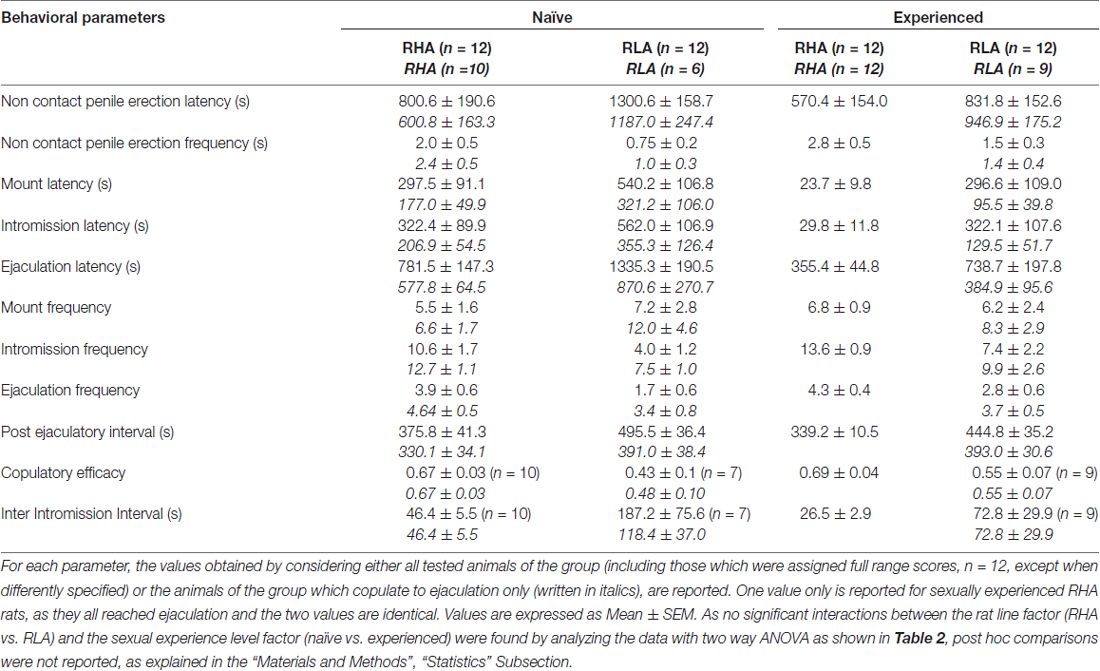 Tabell 1. Kopulatoriske parametre målt i den første serien av kopulatorisk aktivitet (som starter med første montering / intromisjon når kvinnen blir gjort tilgjengelig for hannen og ender etter post-ejakulasjonsintervallet med første montering / inngang i den andre serien) og ikke-kontaktpenning ereksjoner av seksuelt naive og erfarne RHA- og RLA-rotter.
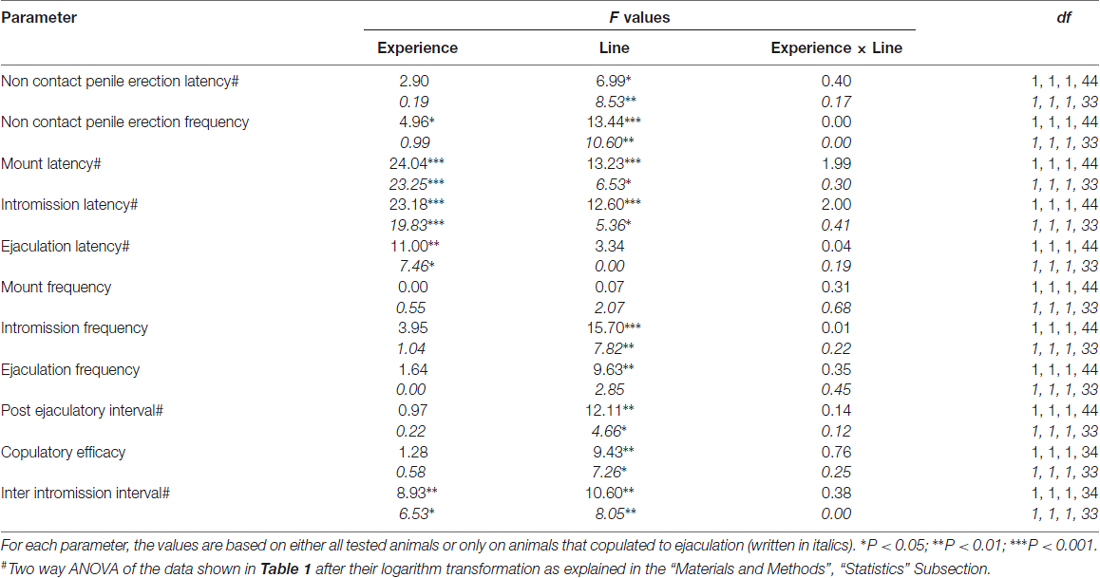 Tabell 2. F verdier og signifikansnivåer av toveis ANOVA utført på data rapportert i tabell 1 ved hjelp av rottelinjen (RHA vs. RLA) og seksuell erfaringsnivå (naiv vs opplevd) som mellom fagfaktorer.
I tillegg ble det gjort en samlet analyse av dataene som ble innhentet fra hver rotte under mikrodialyse, ved først å beregne AUC-ene som ble oppnådd ved å plotte verdiene for konsentrasjonene av dopamin, DOPAC eller NA, eller antall ikke-kontakt ereksjoner, monteringer, intromisjoner og ejakulasjoner vs. tid (startende 1 time etter at hannrotten ble introdusert i paringsburet til slutten av eksperimentet -180 min delt på brøkdeler på 15 min for de nevrokjemiske verdiene - eller på tidspunktet da hunnrotten ble introdusert i paringsburet for atferdsparametrene), og deretter ved å sammenligne de beregnede verdiene ved toveis ANOVA-er ved å bruke rottelinjen og det seksuelle erfaringsnivået mellom forsøkspersonene (gjennomsnittsverdier for AUC-ene for nevrokjemiske og atferdsparametre er rapportert i tabell 4 , og F- verdiene og signifikansnivåene for ANOVA-analysene i tabell 5 ). Til slutt ble en mer detaljert punkt-til-punkt-analyse av hvert datasett (dvs. verdiene for konsentrasjonene av dopamin, DOPAC, NA og antall ikke-kontakt ereksjoner, monteringer, intromisjoner og ejakulasjoner vs. tid) utført ved hjelp av faktorielle ANOVA-er for gjentatte målinger, ved å bruke rottelinjen og nivået av seksuell erfaring mellom forsøkspersonfaktorer og tid (dvs. dialysatfraksjoner) som en faktor innenfor forsøkspersonene ( F- verdiene og signifikansnivåene for disse ANOVA-analysene er rapportert i tabell 6 ). Lignende analyser ble utført, også med tanke på kun basalverdier av nevrokjemiske parametere (de fire siste dialysat-alikvotene samlet før introduksjonen i paringsburet til den reseptive hunnen), hvis gjennomsnittsverdier er rapportert i tabell 3 . Ettersom første, men ikke andreordens interaksjoner ble funnet ved utførelse av generelle faktorielle ANOVA-er for gjentatte målinger, spesielt linje × tid og erfaring × tid-interaksjoner for nevrokjemiske parametere (se tabell 6 ), ble toveis ANOVA-er med linjen eller nivået av seksuell erfaring som mellom forsøkspersoner og tid som innenfor forsøkspersonfaktoren utført på disse datasettene ved å direkte sammenligne seksuelt naive eller erfarne RHA vs. RLA-rotter, eller seksuelt erfarne vs. naive RHA-rotter eller seksuelt erfarne vs. naive RLA-rotter. Resultatene av de post hoc parvise kontrastene utført ved bruk av Tukeys HSD-test på signifikante interaksjoner avslørt av disse toveis ANOVA-ene er rapportert i figur 2. I alle de andre tilfellene ble ikke post hoc- sammenligninger rapportert, da ANOVA-er ikke klarte å avdekke noen signifikant interaksjon mellom rottelinjen, det seksuelle erfaringsnivået og tiden. Statistiske analyser ble alle utført med Graph Pad 5 (PRISM, San Diego, CA, USA) og STATISTICA 12 (Statsoft, Tulsa, OK, USA) med signifikansnivået satt til P < 0.05.
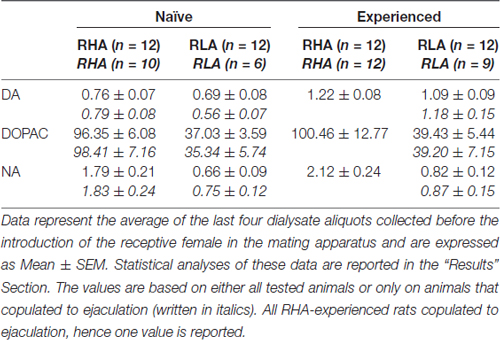 Tabell 3. Basal dopamin (DA), 3,4-Dihydroxyfenyleddiksyre (DOPAC) og noradrenalin (NA) konsentrasjoner (nM) i dialysatet fra medial prefrontal cortex (mPFC) av seksuelt naive og erfarne RHA- og RLA-rotter.
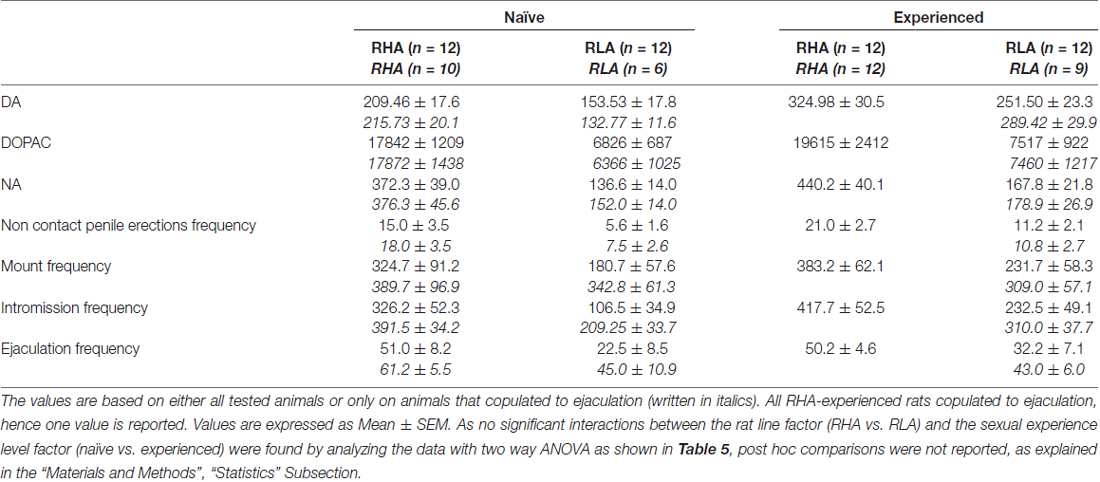 Tabell 4. Samlet vurdering av forskjellene i DA-, DOPAC- og NA-konsentrasjoner og i seksuell oppførsel mellom seksuelt naive og erfarne RHA- og RLA-rotter ved analyse av gjennomsnittlige AUCer oppnådd fra resultatene vist i figurene 2 og 3.
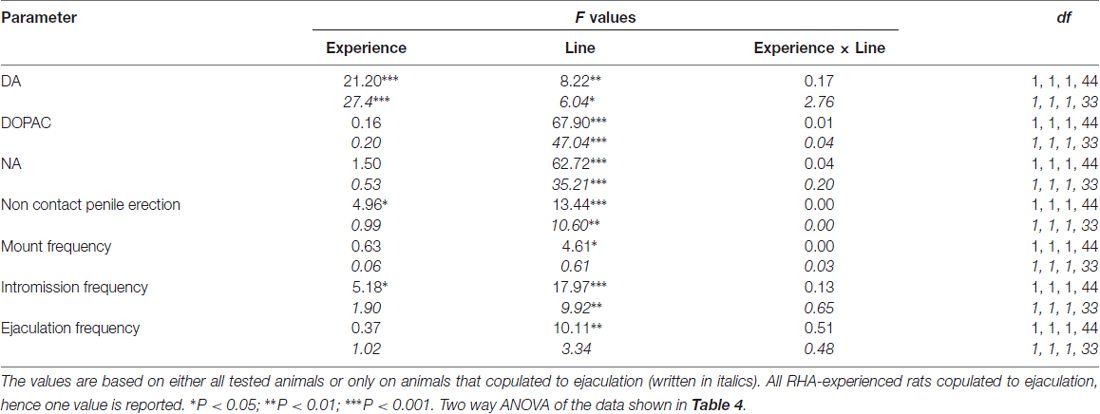 Tabell 5. F verdier og signifikansnivåer av toveis-ANOVAer utført på data rapportert i tabell 4 ved hjelp av rottelinjen (RHA vs. RLA) og seksuell erfaringsnivå (naiv vs opplevd) som mellom fagfaktorer.
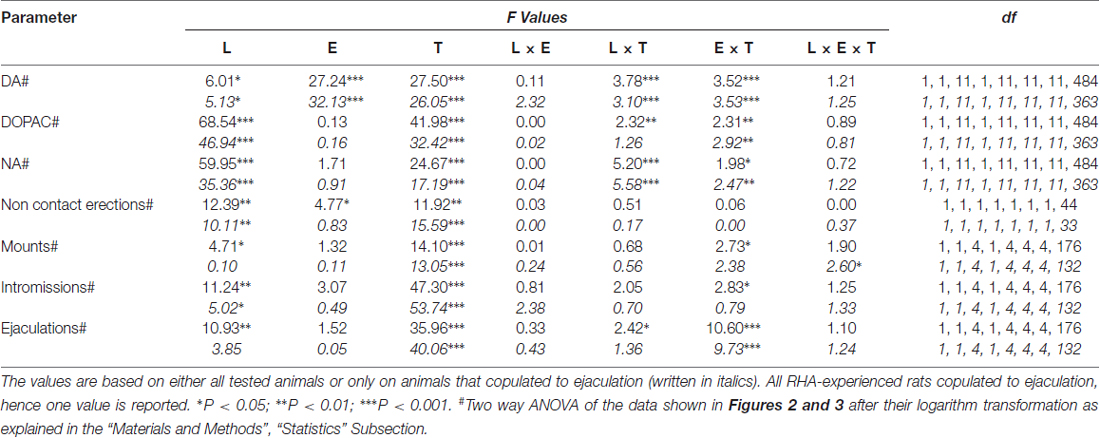 Tabell 6. F verdier og signifikansnivåer av generelle faktoriske ANOVAer for gjentatte tiltak utført på resultatene vist i figurer 2 og 3 ved hjelp av rottelinjen (L; RHA vs RLA) og det seksuelle opplevelsesnivået (E) (naiv vs opplevd) mellom fagfaktorer og tid (T) (dialysatfraksjoner) som innenfor fagfaktor.
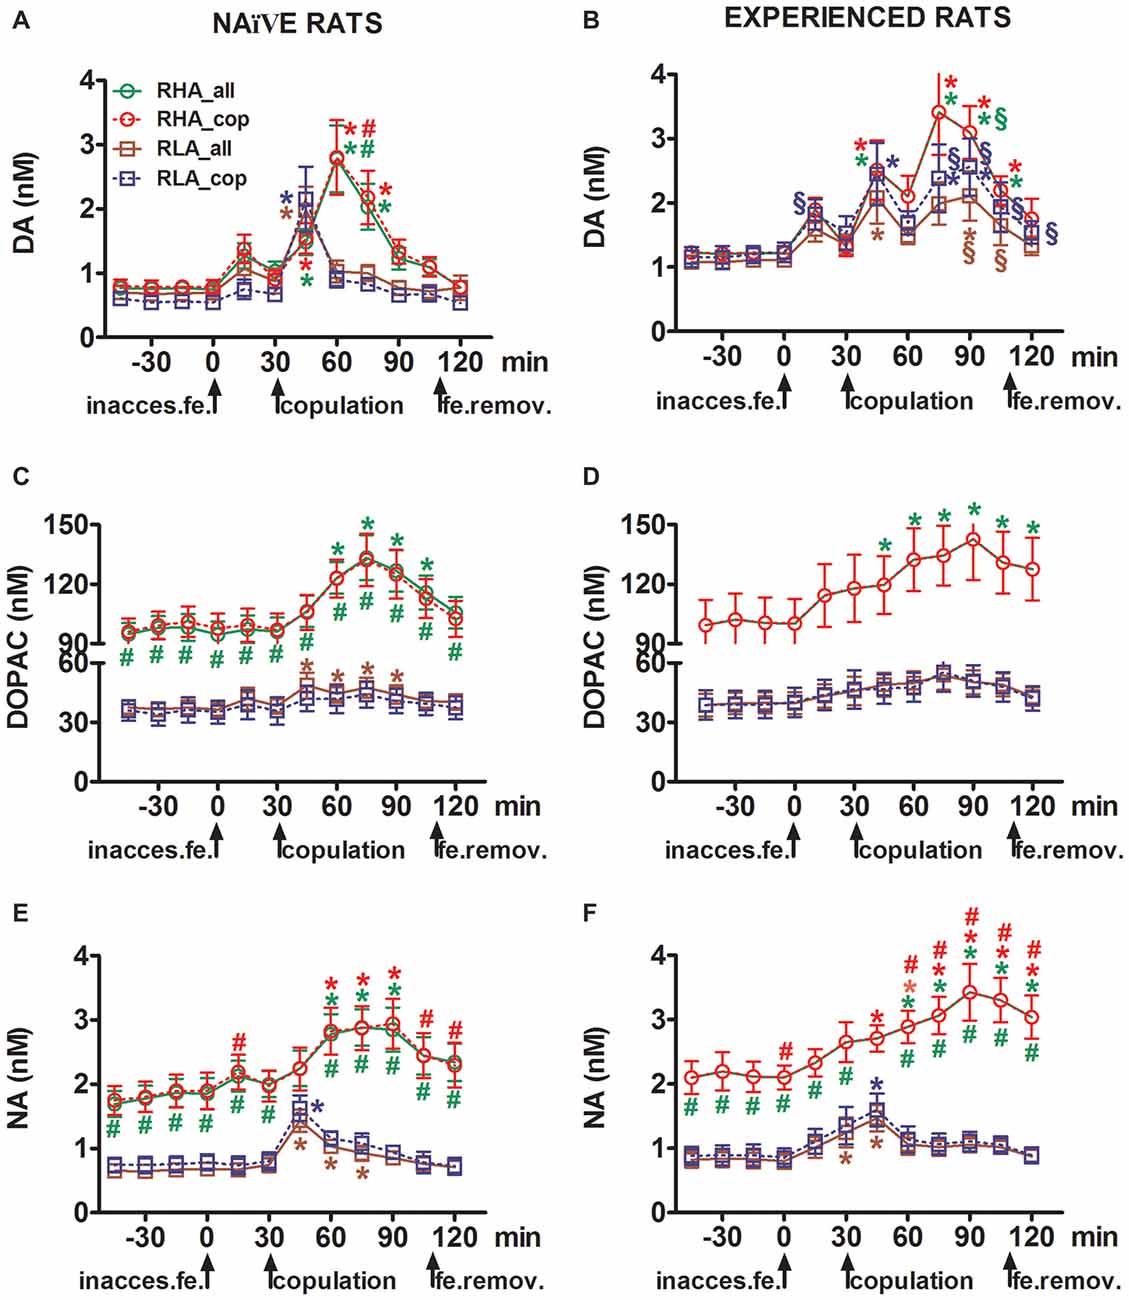 Figur 2. Dopamin (DA), DOPAC og noradrenalin (NA) konsentrasjoner i mPFC dialyserer fra seksuelt naiv (ESS) og erfarne RHA og RLA hanrotter (B, D, F) under seksuell aktivitet med en mottakelig kvinne. Seksuelt naivt (dvs. aldri eksponert før til en seksuelt mottakelig kvinne) og seksuelt opplevd (som gjennomgikk fem kopieringstester) av begge linjene med en mikrodialysesonde stereotaksisk implantert i mPFC ble plassert individuelt i parringsburet. Mikrodialysesonden ble perfusjonert med dialysebufferen som beskrevet i avsnittet "Materialer og metoder". Etter samlingen av fire dialysat-alikvoter for bestemmelse av basale verdier ble en utilgjengelig mottakelig kvinne deretter plassert inne i det lille buret i parringsapparatet (tid = 0, utilgjengelig.fe). Etter 30 min ble den lille buret fjernet, og kopiering ble tillatt for 75 min (kopiering), hvoretter kvinnen ble fjernet fra parringsburet (fe.remov). Under eksperimentet ble ikke-ereksjon og kopulerende parametere målt, og dialysat-alikvoter samlet hver 15-min og analysert for dopamin, DOPAC og NA som beskrevet i avsnittet "Materialer og metoder". Verdier er middel ± SEM av verdiene som er oppnådd av alle 12-rotter per gruppe (RHA_all = faste grønne linjer, RLA_all = faste brune linjer) eller de som kun samles til utløsning (RHA_cop = strekkede røde linjer; RLA_cop = punkterte blå linjer). I erfarne RHA-rotter har alle dyr nådd kopiering og verdiene er identiske. *P <0.05 med hensyn til basale verdier (ingen kvinner) i gruppen (grønn for RHA_all; rød for RHA_cop, brun for RLA_all, blå for RLA_cop); #P <0.05 med hensyn til de tilsvarende verdiene til RLA-gruppen (rød, RHA_all vs. RLA_all; grønn, RHA_cop vs. RLA_cop); §P <0.05 med hensyn til de tidsavstemte verdiene til de seksuelt naive rottene (grønn, erfaren RHA_all vs. naiv RHA_all; rød, erfaren RHA_cop vs. naiv RHA_cop; brun, erfaren RLA_all vs. naiv RLA_all; blå, erfaren RLA_cop vs. naiv RLA_cop) (toveis ANOVAer gjort på de viste dataene etter deres logaritmiske transformasjon, som forklart i "Materials and Methods", "Statistics" Subsection, etterfulgt av Tukeys HSD-tester).
Resultater
RHA og RLA-rotter viser et forskjellig antall ikke-kontakt-reaksjoner og forskjellige mønstre av copulatorisk oppførsel
I tråd med tidligere studier ( Sanna et al., 2014a , b , 2015 ) ble et ulikt antall seksuelt naive hannrotter av typen RHA og RLA involvert i seksuell aktivitet da de ble satt sammen med en mottakelig hunnrotte under innsamling av dialysat-alikvoter fra mPFC ved intracerebral mikrodialyse. Kort fortalt, i denne studien kopulerte 10 av 12 seksuelt naive hannrotter av typen RHA (83 %) til ejakulasjon i sin første kopulasjonstest, mot bare 6 av 12 naive RLA-rotter (50 %) under mikrodialyseeksperimentet. Denne forskjellen ble også funnet hos seksuelt erfarne hannrotter av typen RHA og RLA (etter fem kopulasjonstester), men svekket, der alle 12 RHA-rotter nådde ejakulasjon mot 9 av 12 RLA-rotter under mikrodialyse. I samsvar med tidligere studier viste også i denne studien de to romerske rottelinjene ulik latens og frekvens av ikke-kontakt penisereksjoner når de ble eksponert for en utilgjengelig mottakelig hunn, samt ulike mønstre av kopulerende atferd under seksuell interaksjon. Disse forskjellene ble funnet enten når man vurderte dataene fra alle forsøksdyr i en gitt gruppe, uavhengig av om de kopulerte til ejakulasjon eller ikke (f.eks. ved å tildele full poengsum til de dyrene som ikke viste atferden, det vil si rotter som ikke kopulerte til ejakulasjon), eller når man vurderte dataene fra dyrene som kun viste atferden til en gitt gruppe (f.eks. dyr som kopulerte til ejakulasjon; tabell 1 ). Følgelig avslørte statistiske analyser av verdiene for ikke-kontakt ereksjoner (NCPE) og av kopulerende parametre målt i den første serien av kopulerende aktivitet ved toveis ANOVA-er signifikante forskjeller mellom de to rottelinjene, enten når man vurderte alle forsøksrotter eller kun kopulerende rotter i de fire forsøksgruppene (se tabell 2 ). Faktisk, da dataene fra alle forsøksdyrene ble vurdert, var antallet ikke-kontaktereksjoner høyere, og NCPEL, ML, IL og PEI var betydelig kortere hos RHA-rotter sammenlignet med RLA-rotter. Videre var EF og CE høyere, mens III var betydelig kortere, hos RHA-rotter sammenlignet med RLA-rotter. Noen av forskjellene ovenfor mellom de to romerske rottelinjene hadde en tendens til å avta eller forsvinne ved gjentatte kopulasjonstester. Likevel var noen av disse forskjellene fortsatt tilstede etter stabilisering av seksuell atferd ved gjentatt seksuell erfaring. Lignende resultater ble oppnådd når man bare vurderte verdiene til dyrene i de fire forsøksgruppene som kopulerte til ejakulasjon, bortsett fra EF (se tabell 1 og 2 ).
Basale konsentrasjoner av ekstracellulær dopamin, DOPAC og noradrenalin i mPFC Dialysater fra seksuelt naive og erfarne RHA- og RLA-rotter
Under de foreliggende eksperimentelle forholdene var mengdene dopamin, DOPAC og NA i dialysatene oppnådd fra mPFC av alle (f.eks. Uavhengig av at de var koplet til utløsning eller ikke) seksuelt naive RHA- og RLA-rotter, 2.32 pg og 2.11 pg for dopamin, 322.56 pg og 124.42 pg for DOPAC og 6.05 pg og 2.24 pg for NA i henholdsvis 20 μl dialysat. Lignende mengder ble målt i dialysatene oppnådd fra mPFC av henholdsvis seksuelt erfarne RHA- og RLA-rotter (dopamin: 3.73 pg og 3.33 pg, DOPAC: 353.62 pg og 133.32 pg, NA: 7.17 pg og 2.78 pg i henholdsvis RHA og RLA rotter) . Disse verdiene indikerer en konsentrasjon av henholdsvis xxUMUMX-0.8 nM og XxUMUMX-1.2 nM for henholdsvis ekstracellulær dopamin og DOPAC og XxUMUM-95 nM for ekstracellulær NA i mPFC av RHA-rotter og en konsentrasjon XxUMX-100 nM og Ũ1.8-2.2 nM for henholdsvis ekstracellulær dopamin og DOPAC, og χXUMUM-0.8 nM for ekstracellulær NA, i mPFC av RLA-rotter (tabell 3). Ovennevnte verdier ble oppnådd etter en 2 h ekvilibreringsperiode for dialysebufferen med mPFC ekstracellulær væske. Som gjenoppretting av autentisk dopamin ble DOPAC og NA av dialyseprober anslått til å være nær 20%, ekstracellulær dopamin, DOPAC og NA-konsentrasjoner kan estimeres å ligge nær Ũ4-5 nM i begge linjene for dopamin, Ũ500 og ≅ 200 nM for DOPAC og Ũ10 og Ũ4 nM for NA i henholdsvis mPFC av RHA og RLA rotter. Faktoriske ANOVAer for gjentatte tiltak utført på ovennevnte verdier etter logaritmetransformasjon, viste betydelige forskjeller i basale nivåer av dopamin mellom seksuelt naive og seksuelt erfarne rotter (F(1,44,132) = 26.05, P <0.001), og i basalnivåene av DOPAC (F(1,44,132) = 63.36, P <0.001) og av NA (F(1,44,132) = 42.14, P <0.001) mellom RHA- og RLA-rotter (de siste fire prøvene samlet før introduksjonen av hunnen i det lille buret). Lignende verdier ble funnet når man bare vurderte rotter som kopulerte til utløsning under mikrodialyseeksperimentet (tabell 3). Også i dette tilfellet viste faktoriske ANOVA for gjentatte tiltak utført på verdiene etter logaritmetransformasjon signifikante forskjeller i basale nivåer av dopamin mellom seksuelt naive og seksuelt erfarne rotter (F(1,33,99) = 26.97, P <0.001), og i basalnivåene av DOPAC (F(1,33,99) = 42.95, P <0.001) og av NA (F(1,33,99) = 27.63, P <0.001) mellom RHA- og RLA-rotter.
Konsentrasjonene av ekstracellulær dopamin, DOPAC og noradrenalin i mPFC dialysater fra seksuelt naive og erfarne RHA- og RLA-rotter endres differensielt under seksuell aktivitet
Tilstedeværelsen av den utilgjengelige reseptive hunnrotten i det indre lille buret og påfølgende direkte seksuell interaksjon økte konsentrasjonene av ekstracellulær dopamin, DOPAC og NA i mPFC-dialysatene oppnådd fra både seksuelt naive og erfarne hannrotter av typen RHA og RLA, men med signifikante forskjeller mellom de to rottelinjene og erfaringsnivåforholdene, enten når man vurderte alle forsøksdyrene eller bare de som kopulerte til ejakulasjon (figur 2 ). Faktisk viste toveis ANOVA-er av AUC-ene for konsentrasjonene av dopamin, DOPAC og NA at det totale innholdet av dopamin, DOPAC og NA i hele testen var betydelig høyere hos RHA-rotter sammenlignet med RLA-rotter, og hos seksuelt erfarne sammenlignet med naive rotter (se tabell 4 for AUC-verdier og tabell 5 for F- verdier og signifikansnivå). Disse forskjellene ble ytterligere bekreftet av punkt-til-punkt faktorielle ANOVA-er for gjentatte målinger av dopamin-, DOPAC- og NA-mengder hos de to seksuelt naive og erfarne rottelinjene underveis i eksperimentet, noe som avdekket signifikante hovedeffekter av Linje, Erfaring, Tid og signifikante Linje × Tid og Erfaring × Tid førsteordens interaksjoner (se tabell 6 for F- verdier og signifikansnivå).
Konsentrasjonene av ekstracellulær dopamin, DOPAC og noradrenalin i mPFC-dialysater oppnådd fra seksuelt naive RHA- og RLA-rotter endres differensielt under seksuell aktivitet
I seksuelt naive RHA- og RLA-rotter økte ekstracellulær dopamin, men ikke DOPAC, først når det ble satt i nærvær av den utilgjengelige kvinnen, mens NA økte kun hos RHA-rotter. I naive RHA-rotter økte ekstracellulær dopamin ytterligere i den første 15 min seksuell interaksjon som funnet med DOPAC og NA. Økningen i ekstracellulær dopamin, DOPAC og NA varer for hele kopieringstiden, med dopamin, DOPAC og NA når en toppverdi ved henholdsvis 60 min, 75 min og 75 min, deretter ekstracellulær dopamin og i mindre grad DOPAC og NA , redusert til verdier som ligner de basale segene etter fjerning av kvinnen.
På den annen side forekom den første signifikante økningen, og toppverdien, i ekstracellulær dopamin, DOPAC og NA hos naive RLA-rotter i løpet av de første 15 minuttene av kopulasjonen. I motsetning til RHA-rotter hadde imidlertid ekstracellulær dopamin, DOPAC og NA en tendens til å gå tilbake til verdier som ligner på de basale hos RLA-rotter innen de første 30 minuttene med direkte interaksjon med hunnen (se figur 2A, C, E ).
Til slutt, under kopulasjon, var økningene i ekstracellulær dopamin større og mer vedvarende hos seksuelt naive RHA- enn RLA-rotter (se figur 2A ), mens konsentrasjonene deres var like, men ikke identiske, på tvers av de to rottelinjene i fravær av hunnen (se ovenfor og tabell 3 ). Interessant nok, selv om det ikke ble funnet noen forskjell mellom de to romerske linjene i prosentvis økning av DOPAC- og, i mindre grad, NA-konsentrasjoner under tilstedeværelsen av den reseptive hunnen, ble det observert en forskjell på mer enn dobbelt så mye i absolutte verdier av DOPAC- og NA-konsentrasjoner mellom de to rottelinjene både under basale forhold (se tabell 3 ) og gjennom hele testen med den reseptive hunnen (se figur 2C, E ).
Konsentrasjonene av ekstracellulær dopamin, DOPAC og noradrenalin i mPFC-dialysater oppnådd fra seksuelt opplevde RHA- og RLA-rotter, endres differensielt under seksuell aktivitet
Som funnet hos seksuelt naive RHA- og RLA-rotter, førte tilstedeværelsen av den utilgjengelige hunnen og påfølgende direkte seksuell interaksjon til en økning av ekstracellulær dopamin og DOPAC i mPFC-dialysatet oppnådd fra seksuelt erfarne hann-RHA- og RLA-rotter. Imidlertid ble det også i dette tilfellet funnet forskjeller relatert til rottelinjer, enten når alle forsøksdyrene ble vurdert, eller i mindre grad bare de som kopulerte til ejakulasjon (figur 2 ). Hos seksuelt erfarne RHA- og RLA-rotter skjedde den første økningen i ekstracellulær dopamin hos den utilgjengelige hunnen. Deretter økte dopaminkonsentrasjonene under kopulasjon i begge rottelinjene. Dopaminkonsentrasjonene nådde sine toppverdier etter 45–60 minutters kopulasjon, og sank sakte mot basalverdier på slutten av kopulasjonstesten (se figur 2B ). I likhet med seksuelt naive rotter var ekstracellulære dopaminkonsentrasjoner høyere hos seksuelt erfarne RHA-rotter sammenlignet med RLA-rotter, hovedsakelig i alikvoter av dialysat samlet inn i den sentrale delen av kopulasjonsfasen (etter 30–45 minutters kopulasjon). DOPAC-konsentrasjonene økte under tilstedeværelsen av kun den utilgjengelige hunnen hos RHA-rotter, mens de økte i lignende grad i begge rottelinjene under kopulasjon (toppverdier ved 75–90 min), og hadde en tendens til å gå tilbake til basalverdier ved slutten av kopuleringstesten (se figur 2D ). NA-konsentrasjonene økte også i begge seksuelt erfarne rottelinjene etter introduksjonen av hunnen, og nådde toppverdier ved 90 min hos RHA-rotter og ved 45 min hos RLA-rotter (se figur 2F ). I motsetning til dopamin (se ovenfor) ble det funnet lignende forskjeller i økningen av DOPAC- og NA-konsentrasjoner hos seksuelt erfarne rotter fra begge linjene når man vurderte alle dyr vs. dyr som kun nådde ejakulasjon. Imidlertid, som funnet hos seksuelt naive rotter, selv om prosentvise økninger i DOPAC- og NA-konsentrasjoner var like, ble det funnet signifikante forskjeller i absolutte verdier av DOPAC og NA mellom seksuelt erfarne RHA- og RLA-rotter gjennom hele testen (dvs. før, under og etter tilstedeværelsen av den mottakelige hunnen), med RHA-rotter som viste høyere verdier enn RLA-rotter (se tabell 3 for basalverdier og figur 2D, F for verdiene gjennom hele testen).
Seksuell erfaring påvirker endringene i dopamin- og noradrenalinkoncentrasjoner i mPFC-dialysater oppnådd fra RHA og RLA-rotter under seksuell aktivitet
En sammenligning av konsentrasjonene av ekstracellulær dopamin og NA hos seksuelt naive og erfarne RHA- og RLA-rotter viste at seksuell erfaring endret konsentrasjonen av ekstracellulær dopamin og, i mindre grad, av NA i begge rottelinjene, enten når man vurderte alle forsøksdyrene eller de som kun kopulerte til ejakulasjon (figur 2A, B, E, F ). Følgelig oppstod det signifikante forskjeller i basalverdiene av dopamin mellom seksuelt naive og erfarne rotter fra begge linjene (se tabell 3 ), og dopaminverdiene under kopulerende aktivitet var generelt høyere hos seksuelt erfarne RHA- og RLA-rotter sammenlignet med deres naive motparter (se figur 2B ). Videre, hos seksuelt erfarne RHA-rotter, selv om dopaminøkningen funnet under tilstedeværelsen av den utilgjengelige hunnen fulgte det samme tidsmessige mønsteret som sett hos seksuelt naive rotter, ble det funnet forskjeller i det tidsmessige mønsteret under kopulering. Faktisk, i dette tilfellet, i motsetning til det som observeres hos seksuelt naive RHA-rotter (én hovedtopp ved 60 min), ble det funnet to hovedtoppverdier, den første etter 15 min og den andre etter 45 min med kopulering. Etter denne siste økningen hadde dopaminverdiene en tendens til å gå tilbake til basalverdiene (se figur 2B ).
Et lignende bilde ble funnet hos seksuelt naive kontra erfarne RLA-rotter. Faktisk, i likhet med det som ble funnet hos RHA-rotter, ble det også hos erfarne RLA-rotter funnet et tidsmessig mønster karakterisert av tre hovedøkninger i ekstracellulær dopamin: den første hos den utilgjengelige hunnen og de to andre under kopulasjon, dvs. etter 15 minutter og 60 minutter med kopulasjon (se figur 2A, B ). Generelt ser seksuell erfaring ut til å produsere mer langvarige endringer i det tidsmessige mønsteret for dopaminfrigjøring i begge rottelinjer når man går fra den seksuelt naive til den erfarne tilstanden.
Som vist i figur 2C–F ble det kun observert små forskjeller i DOPAC- og NA-konsentrasjonen mellom naive og erfarne rotter fra begge linjene. Imidlertid ble det ikke observert en signifikant trend i ekstracellulær NA mot høyere verdier hos erfarne sammenlignet med naive rotter i basal (før introduksjonen av den reseptive hunnen, se tabell 3 ) og i de totale NA-mengdene, noe som ble vist ved AUC-verdier (se tabell 4 ) beregnet på ekstracellulære konsentrasjoner oppnådd fra hele testen (før og under tilstedeværelsen av den reseptive hunnen). Til slutt var det tidsmessige mønsteret av NA-konsentrasjoner svært likt når man sammenlignet erfarne rotter fra begge rottelinjene med deres naive motparter, noe som indikerer at seksuell erfaring kan føre til en generell økning i ekstracellulær NA snarere enn til endringer i mønsteret for økningen (se figur 2E, F ).
Endringer i konsentrasjonene av ekstracellulær dopamin og noradrenalin i mPFC-dialysater oppnådd fra seksuelt naive og erfarne RHA- og RLA-rotter forekommer samtidig med endringer i seksuell adferd
Forskjellene i konsentrasjonene av ekstracellulær dopamin, DOPAC og NA i dialysatene oppnådd fra mPFC, funnet hos både seksuelt naive og erfarne RHA- og RLA-rotter under testen (figur 2 ), oppstod sammen med modifikasjoner i forskjellige seksuelle parametere målt i løpet av de to hovedfasene av forsøkene (dvs. henholdsvis utilgjengelige hunnrotter og tilgjengelige for hannrotter), som blant annet inkluderer ikke-kontakt penisereksjoner (figur 3A, B ), monteringer (figur 3C, D ), intromisjoner (figur 3E, F ) og ejakulasjoner (figur 3G, H ). Disse forskjellene ble funnet enten når alle forsøksdyrene ble vurdert, eller de som kun kopulerte til ejakulasjon. Faktisk avdekket en foreløpig analyse av AUC-verdiene for disse parameterne ved hjelp av toveis ANOVA-analyser (se tabell 4 for AUC-verdier og tabell 5 for F -verdier og signifikansnivå), etterfulgt av en punkt-til-punkt-analyse av verdiene for disse parameterne gjennom hele eksperimentet ved hjelp av faktoriell ANOVA for gjentatte målinger, signifikante hovedeffekter av Linje, Erfaring, Tid, signifikante interaksjoner av første orden Linje × Tid og Erfaring × Tid, og en signifikant interaksjon av andre orden for ridedyr (se tabell 6 for F- verdier og signifikansnivå). Følgelig, i tråd med tidligere studier ( Sanna et al., 2015 ): (i) seksuelt naive RHA-rotter viste flere ikke-kontakt penisereksjoner, ridedyr, intromisjoner og ejakulasjoner enn sine RLA-motparter; (ii) seksuelt erfarne RHA-rotter viste et høyere antall ikke-kontakt penisereksjoner, intromisjoner og ejakulasjoner enn sine RLA-motparter; og (iii) seksuelt erfarne rotter av begge linjer, og spesielt RLA-rotter, viste flere ikke-kontakt penisereksjoner, intromisjoner og ejakulasjoner enn sine seksuelt naive motparter. Faktisk, mens hos RHA-rotter skjedde de fleste endringene produsert av seksuell erfaring i tidsforløpet snarere enn i hyppigheten av atferdsparametrene (f.eks. kopulerte erfarne rotter hovedsakelig i første halvdel av testen, mens naive rotter viste en lignende kopulerende trend gjennom hele testen), ble en mer markant generell forbedring av seksuell atferd, hovedsakelig i seksuell ytelse, hos RLA-rotter produsert av seksuell erfaring, noe som ble avslørt av endringene i verdiene av kopulerende parametere hos erfarne RLA-rotter sammenlignet med deres naive motparter.
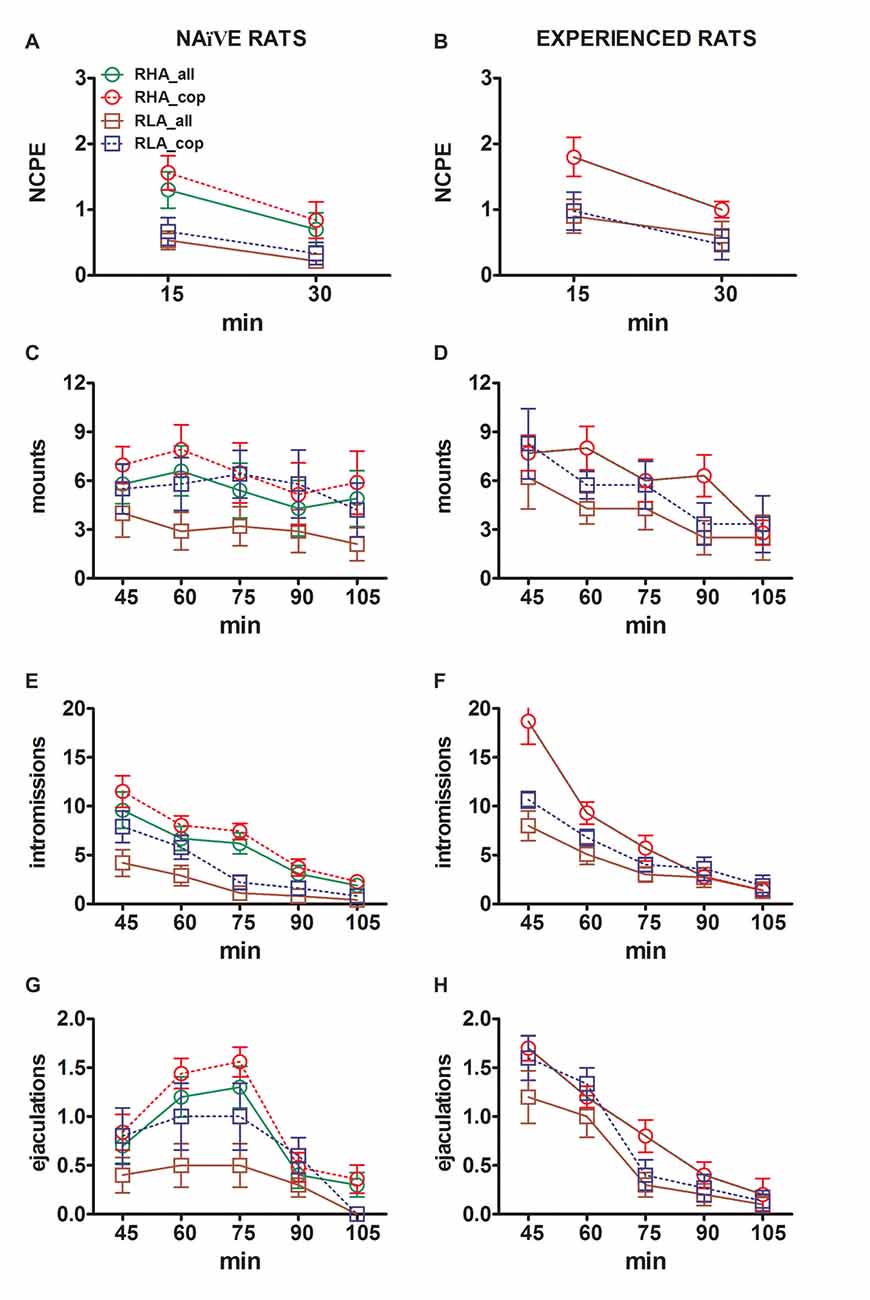 Figur 3. Endringer i antall ikke-berørte penile ereksjoner (NCPE), fester, intromissjoner og utløsning som er registrert fra seksuelt naiv (A, C, E, G) og erfarne RHA- og RLA-rotter (B, D, F, H) under mikrodialyse eksperimenter rapportert i figur 2. Alle eksperimentelle forholdene var identiske med de som er beskrevet i legenden av figur 2. Verdier er midler ± SEM av verdiene som er oppnådd av alle 12-rotter per gruppe (inkludert de som ble tildelt heltidsscorer, RHA = faste grønne linjer, RLA = faste brune linjer) eller de som bare kopierte til utløsning (RHA = stiplede røde linjer ; RLA = stiplede blå linjer). I erfarne RHA-rotter har alle dyr nådd kopiering og verdiene er identiske. Som ingen signifikante vekselvirkninger mellom rottelinjens faktor (RHA vs RLA) ble den seksuelle erfaringsnivåfaktoren (naiv vs opplevd) og tid funnet ved å analysere dataene med toveis-ANOVAer som vist i tabell 6, post hoc sammenligninger ble ikke rapportert, som forklart i "Materialer og metoder", "Statistikk" underavsnitt.
Diskusjon
Denne studien bekrefter og utvider funnene fra tidligere studier som viser at RHA- og RLA-rotter, som viser markant forskjellige mestringsstiler som respons på aversive forhold ( Driscoll og Bättig, 1982 ; Giorgi et al., 2003a ; Steimer og Driscoll, 2003 ), viser distinkte atferdsmønstre i nærvær av en utilgjengelig mottakelig hunn og under klassiske kopulatoriske tester ( Sanna et al., 2014a , b , 2015 ). Følgelig viser også denne studien at seksuelt naive RHA-rotter (som aldri hadde vært eksponert for en mottakelig hunn før) viste høyere seksuell motivasjon og bedre seksuell ytelse sammenlignet med seksuelt naive RLA-rotter. F.eks. viser RHA-rotter et høyere antall ikke-kontakt penisereksjoner (feromoninduserte penisereksjoner betraktet som en indeks for seksuell opphisselse; Sachs et al., 1994 ; Sachs, 2000 ) og forskjellige pro-seksuelle endringer i flere kopulerende parametere som funnet i tidligere studier ( Sanna et al., 2014a , b , 2015 ). Disse forskjellene vedvarte fortsatt i begge romerske rottelinjene etter tilegnelse av seksuell erfaring, det vil si etter stabilisering av seksuell atferd med fem eksponeringer for og kopulasjonstester med en mottakelig hunn. Denne studien viser også for første gang at i både RHA- og RLA-rottelinjer, enten i naive eller erfarne tilstander, forekom ikke-kontakt penisereksjoner og seksuell interaksjon samtidig med en økning i konsentrasjonene av ekstracellulær dopamin (og dens hovedmetabolitt DOPAC) og NA i dialysatene oppnådd ved intracerebral mikrodialyse fra mPFC hos begge romerske rottelinjer. Interessant nok ser disse økningene i ekstracellulær dopamin og NA i mPFC ut til å være relatert til forskjeller enten i rottefenotypen eller i nivået av seksuell erfaring. Følgelig, som vist i detalj i resultatdelen, viste både seksuelt naive og erfarne RHA-rotter høyere og langvarige økninger i ekstracellulær dopamin og NA sammenlignet med sine RLA-motparter i både appetitt- og konsummatorifasen av seksuell atferd. Dessuten viste seksuelt erfarne rotter av begge romerske linjer høyere og langvarige økninger i ekstracellulær dopamin og NA i mPFC i begge faser av seksuell atferd sammenlignet med sine naive motparter. Til slutt var alle de ovennevnte forskjellene i ekstracellulær dopamin og NA i mPFC tilsynelatende relatert til forskjeller i atferdsparametrene for seksuell atferd. F.eks. viste seksuelt erfarne rotter av begge romerske linjer høyere seksuell motivasjon og bedre kopulerende ytelse sammenlignet med sine naive motparter, og seksuelt naive og erfarne RHA-rotter viste høyere seksuell motivasjon og bedre kopulerende ytelse sammenlignet med sine seksuelt naive og erfarne RLA-motparter.
Med hensyn til økningen i ekstracellulær dopamin funnet i mPFC dialysatet under seksuell aktivitet, oppsto den første økningen i den første 15 min etter introduksjonen av den seksuelt mottakelige kvinnen i parringsapparatet, da kvinnene var utilgjengelig for mannen, som vanligvis viser i denne tilstanden ikke kontakt penis ereksjoner. En annen og større økning i ekstracellulær dopamin oppstod i løpet av den første 15-min etter at kvinnen ble gjort tilgjengelig for hanen for kopiering. Interessant, mens det i den naive tilstanden økte ekstracellulær dopamin hovedsakelig i den første delen av testen med den tilgjengelige kvinnelige med en tendens til å gå tilbake til basalverdiene i den andre delen, forblir dopamin i den seksuelt opplevde tilstand forhøyet gjennom testen som nå toppverdier etter 45-60 min kopiering i begge romerske rotte linjer.
Bortsett fra de ovennevnte forskjellene i ekstracellulær dopamin i de ulike faser av seksuell aktivitet mellom RHA og RLA-rotter i seksuelt naiv og erfaren tilstand, viser denne studien også uventede viktige og svært signifikante forskjeller i ekstracellulær DOPAC-konsentrasjon mellom de to romerske rotte linjene før (dvs. , basale verdier) og etter introduksjonen av den mottakelige kvinnen i parringsapparatet. Følgelig ble basale verdier av ekstracellulær DOPAC i mPFC dialysatet funnet i RHA-rotter for å være ca. 2.6-fold høyere enn de som ble funnet i RLA-rotter. Denne forskjellen mellom RHA og RLA-rotter oppstod og vedvarende i seksuelt naive og erfarne forhold til tross for svært beskjedne forskjeller i basalverdiene til ekstracellulær dopamin i mPFC dialysatene oppnådd fra de to romerske rotte linjene under disse eksperimentelle forhold. Samlet sett kan disse forskjellene indikere en annen dopaminomsetning på nivået av mPFC mellom de to romerske rotte linjene. Følgelig reflekterer DOPAC-konsentrasjoner vanligvis mengden av dopamin frigjort og deretter gjenfinnes av dopaminerge nerveterminaler og omdannes til DOPAC ved monoaminooksydase (MAO; Carlsson, 1975). Derfor foreslår de høyere basale DOPAC-konsentrasjonene som finnes i RHA-rotter at høyere mengder dopamin frigjøres og gjenfinnes av dopaminergiske nerveender i mPFC av RHA-rotter, f.eks. En høyere basal aktivitet i det mesokortiske dopaminerge systemet av RHA-rotter i forhold til RLA-rotter rotter. En høyere mesokortisk dopaminerge tone i RHA-rotter enn i RLA-rotter støttes også av høyere ekstracellulære dopaminkonsentrasjoner funnet under seksuell aktivitet i mPFC dialysatet fra både seksuelt naive og erfarne RHA-rotter i forhold til de av deres RLA-kolleger. I denne forbindelse er det viktig å huske at en høyere dopaminerg tone anses å være ansvarlig, i hvert fall delvis, for mange av de forskjellige og til og med motsatte atferdsegenskaper som finnes i RHA og RLA-rotter. RHA-rotter er følgelig aktive kopimaskiner, høyt impulsive, nyhet og sensasjonssøkere, og er utsatt for inntak og misbruk av flere klasser av narkotikamisbruk, mens RLA-rotter er reaktive copers, hyperemotional og er tilbøyelige til å utvikle depressive symptomer (Zeier et al., 1978; Giorgi et al., 1994, 2003b, 2007; Corda et al., 1997, 2014; Escorihuela et al., 1999; Steimer og Driscoll, 2003; Lecca et al., 2004; Giménez-Llort et al., 2005; Carrasco et al., 2008; Fattore et al., 2009; Moreno et al., 2010; Coppens et al., 2012; Díaz-Morán et al., 2012; Sabariego et al., 2013; Manzo et al., 2014a,b; Oliveras et al., 2015), inkludert høyere seksuell motivasjon og bedre copulatorisk ytelse av seksuelt naive og erfarne RHA-rotter mot RHA-rotter (Sanna et al., 2015). Den høyere økningen i konsentrasjonen av ekstracellulær dopamin funnet i dialysatet fra mPFC av seksuelt naive og erfarne RHA-rotter, ligner de høyere ekstracellulære dopaminkonsentrasjoner funnet i dialysatet fra nukleotilførselen til seksuelt naive og erfarne RHA-rotter med hensyn til deres RLA-kolleger (Sanna et al., 2015). I motsetning til mPFC var imidlertid de basale nivåene av ekstracellulær dopamin og DOPAC i dialysatet fra nucleus accumbens av både seksuelt naive og erfarne RHA- og RLA-rotter ikke vesentlig forskjellig (Sanna et al., 2015). Dermed kan den høyere mesolimbiske dopaminerge tonen i kjernen accumbens av seksuelt naive og erfarne RHA-rotter kun utledes av de høyere ekstracellulære dopaminkonsentrasjoner funnet i dialysatene fra nucleus accumbens av RHA-rotter når de sammenlignes med RLA-kolleger i nærvær av mottakelige kvinne, og ikke av en annen basal dopaminerg aktivitet avslørt av henholdsvis høyere og lavere basale nivåer av DOPAC-konsentrasjon i henholdsvis RHA-rotter og RLA-rotter, som viste seg å forekomme i mPFC i denne studien. Dette er også i tråd med resultatene fra tidligere rapporter som viser at ekstracellulære dopaminnivåer i dialysatet fra mPFC av RHA-rotter ble funnet høyere enn RLA-rotter, mens tilsvarende dopaminnivåer ble funnet i dialysatet fra skallet til kjernen accumbens av både RHA og RLA rotter under forskjellige eksperimentelle forhold (D'Angio et al., 1988; Scatton et al., 1988; Willig et al., 1991; Giorgi et al., 2003a, 2007). Til tross for de ovennevnte forskjellene mellom mPFC og nucleus accumbens, synes seksuell erfaring å produsere i mPFC lengre varige økninger i det temporale mønsteret av dopaminfrigivelse i begge romerske rotte linjer når de går fra den seksuelt naive til den erfarne tilstanden, selv om slike øker var vanligvis høyere hos RHA-rotter enn RLA-rotter. Dette er noe forskjellig fra det som finnes i kjernen accumbens, hvor seksuell erfaring har en tendens til å skifte ekstracellulær dopamin øker til den første delen av den kopulatoriske testen i RHA-rotter, samtidig som den økte den gjennom hele kopieringstesten i RLA-rotter (Sanna et al., 2015).
Så vidt vi vet, viser denne studien også for første gang at ikke bare ekstracellulær dopamin, men også ekstracellulær NA øker under seksuell aktivitet i dialysatet fra mPFC hos både RHA- og RLA-rotter, slik det ble funnet med dopamin, men også i dette tilfellet med forskjeller relatert til den romerske rottelinjen og til seksuell erfaring. Spesielt, i motsetning til basale dopaminnivåer som ble funnet svært like i dialysatet fra mPFC hos både RHA- og RLA-rotter, var de basale nivåene av ekstracellulær NA i dialysatet fra mPFC hos RHA-rotter betydelig høyere (omtrent 2,5 ganger) enn hos RLA-rotter. Årsakene til disse forskjellene er ukjente, men som diskutert ovenfor for dopamin og DOPAC, kan disse resultatene indikere at det finnes en høyere basal noradrenerg tone i det minste i mPFC-cortex hos RHA-rotter sammenlignet med RLA-rotter. En slik høyere noradrenerg tone kan også være involvert i de forskjellige og ofte motsatte atferdstrekkene som finnes hos RHA- og RLA-rotter, som diskutert ovenfor for dopamin. Ytterligere støtte for en høyere noradrenerg tone hos RHA-rotter enn hos RLA-rotter i mPFC kommer fra resultatene som viser at forskjellene i basale ekstracellulære NA-nivåer vedvarte også under seksuell aktivitet i både seksuelt naive og erfarne tilstander. F.eks. økte ekstracellulære NA-nivåer i mPFC-dialysatet hos RHA-rotter når de ble eksponert for den utilgjengelige hunnen, og i løpet av hele kopulasjonsperioden mye mer enn hos RLA-rotter, der NA-nivåene bare økte i de første 15 minuttene av kopulasjonsperioden, hvoretter NA-nivåene returnerte til basale verdier. Disse endringene i ekstracellulære NA-nivåer ble sett i både seksuelt naive og erfarne tilstander, men økningene i NA-nivåer var høyere hos seksuelt erfarne RHA- og RLA-rotter sammenlignet med deres seksuelt naive motparter. Dermed induserer seksuell erfaring tilsynelatende en ytterligere potensering av den noradrenerge aktiviteten i mPFC hos RHA-rotter og, i mindre grad, hos RLA-rotter, som allerede diskutert for dopamin. De samtidig høyere noradrenerge og dopaminerge tonene i mPFC hos RHA-rotter sammenlignet med RLA-rotter fortjener en kommentar. Faktisk ble det rapportert at noradrenerg aktivitet i mPFC kan påvirke dopaminfrigjøring gjennom forskjellige mekanismer (se for eksempel Carboni et al., 1990 , 2006 ; Gresch et al., 1995 ; Westernik et al., 1998 og referanser deri). En av disse er relatert til aktiviteten til NET, som viste seg å binde dopamin med en affinitet som er enda høyere enn den for NA i synaptosomer oppnådd fra homogenater av PFC ( Horn, 1973 ). Hvis dette skulle skje i mPFC in vivo , kunne dopamin frigjort i mPFC gjenfanges ikke bare av dopaminerge, men også av noradrenerge nerveterminaler med en hastighet som er enda høyere enn for NA. Dette kan igjen føre til en økning i dopaminfrigjøring fra dopaminerge terminaler (f.eks. økt dopaminerg tone) for å kompensere for mengden dopamin som fjernes fra den synaptiske kløften. Dermed kan den høyere noradrenerge tonen funnet hos RHA-rotter bidra, i det minste delvis, til den høyere dopaminerge tonen funnet i mPFC hos RHA-rotter sammenlignet med RLA-rotter. Ytterligere studier er nødvendige for å bekrefte denne muligheten. Det er verdt å merke seg at forskjellen i noradrenerg aktivitet identifisert i denne studien i mPFC mellom RHA- og RLA-rotter også kan spille en rolle i deres ulike respons på antidepressiv behandling. Faktisk anses RHA-rotter som en modell for resiliens og RLA-rotter som en modell for sårbarhet for depresjon. Følgelig forbedret akutt eller kronisk behandling med antidepressiva som desipramin, fluoksetin og klorimipramin, alle betydelig atferdsresponsene i tvungen svømmetest hos RLA-rotter uten å påvirke responsene til RHA-rotter ( Piras et al., 2010 , 2014 ).
Endelig bekrefter og forklarer denne studien og utvider tidligere funn som viser at mPFC er involvert i kontrollen av seksuell atferd, selv om den nøyaktige rollen i dette hjernen i seksuell oppførsel er langt fra å være klar (Fernández-Guasti et al., 1994; Agmo og Villalpando, 1995; Agmo et al., 1995; Hernández-Gonzáles et al., 1998, 2007; Kakeyama et al., 2003; Balfour et al., 2006; Afonso et al., 2007; Davis et al., 2010; Febo, 2011). Nylig viste selektiv cellefire i mPFC under nærmer seg atferd av en mannlig rotte mot en utilgjengelig seksuelt mottakelig kvinne ved bruk av et enkeltcellebrennende opptaksparadigm (Febo, 2011). Interessant nok var nevroner som ikke reagerte under den første utstillingen av mannen til den utilgjengelige mottakelige kvinnen, aktive under den andre utstillingen, som om den tidligere erfaringen var i stand til å indusere plastiske endringer som førte til variasjon i adferdsresponsene. Ikke desto mindre ble lesjoner med ibotinsyre av mPFC funnet ikke i stand til å endre seksuell oppførsel av hannrotter med en seksuelt mottakelig kvinne, eller uttrykket av betinget stedspreferanse for seksuell belønning. Imidlertid ble evnen til å danne betinget aversjon mot seksuell aktivitet, når den ble parret med aversive stimuli, fullstendig avskaffet i disse lesioned dyrene (Davis et al., 2010). Dette antyder at mPFC-aktivering under seksuell adferd spiller en rolle i integrasjonen av ekstern og intern informasjon for utførelse og kontroll av målrettet adferd snarere enn i uttrykk for medfødte svar på naturlige forsterkere (se Goto and Grace, 2005). Mer viktig for dette arbeidet har flere studier vist at hjerneområder som er involvert i seksuell motivasjon og seksuell oppførsel som kjernefysikk, ventral tegmental område, medial preoptisk område, sengekjerne av stria terminalis, basolateral amygdala og parvocellulær subparafascicular thalaminkjerne, mottar innganger fra mPFC under seksuell aktivitet (se Balfour et al., 2006). Mange av disse hjerneområdene deltar i en kompleks nevral krets involvert i kontroll av seksuell oppførsel, fra seksuell motivasjon og belønning til seksuell ytelse. Denne kretsen inkluderer oksytocinergiske nevroner som stammer fra PVN i hypothalamus (PVN) og projiserer til ventral tegmentalområdet, nukleus accumbens, hippocampus, amygdala, PFC, bed-kjernen til stria terminalis, medulla oblongata og ryggmargen, mesolimbisk / mesokortisk dopaminerge nevroner som projiserer fra det ventrale tegmentale området til nucleus accumbens og PFC, incertohypothalamiske dopaminerge neuroner og glutamatergiske nevroner som deltar på lokalt og systemnivå i flere områder av kretsen (se Melis og Argiolas, 1995, 2011; Melis et al., 2003, 2007, 2009, 2010; Succu et al., 2007, 2008, 2011). Dermed kan økningen av ekstracellulær dopamin (men også av NA) i dialysatene fra mPFC sett under seksuell aktivitet indikere at mPFC er en aktiv del av denne kretsen, det vil si at mesokortiske dopaminerge neuroner deltar i kontrollen av seksuell aktivitet sammen med noradrenerge, mesolimbiske dopaminerge, oksytocinergiske og glutamaterge neuroner, selv om det ikke synes å være strengt nødvendig for uttrykk for seksuell oppførsel (Davis et al., 2010). I tråd med denne hypotesen viser denne studien at forskjellene i dopamin og NA-frigivelse i mPFC under seksuell aktivitet skjedde samtidig med forskjeller i antall ikke-berørte penile ereksjoner og endringer i kopulatoriske parametere, med høyere frigivelse av dopamin og NA under de appetitive og forbruksfasene relatert til høyere seksuell motivasjon og bedre kopulatoriske forestillinger i begge romerske rottelinjer og i både seksuelt naive og erfarne forhold.
Diskusjonen gitt ovenfor er hovedsakelig basert på den velkjente økningen av ekstracellulær dopamin som forekommer i kjernen accumbens av hannrotter under seksuell aktivitet (Pfaus et al., 1990; Pleim et al., 1990; Pfaus og Phillips, 1991; Damsma et al., 1992; Wenkstern et al., 1993). Imidlertid kan dopamin og andre nevrotransmittere bli frigjort i mPFC (og i nukleotilførselen) i andre eksperimentelle forhold, som for eksempel under stress eller å takle det (Thierry et al., 1976; Fadda et al., 1978), som ikke er strengt knyttet til seksuell oppførsel. Dermed kan man argumentere for at dopaminforhøyelsen funnet i ekstracellulær dopamin i mPFC (denne studien) eller i nukleinsystemet (Sanna et al., 2015), er relatert mer til stresset sekundært til, eller til å takle tilstedeværelsen av og / eller interaksjon med den seksuelt mottakelige kvinnen i stedet for seksuell aktivitet. Dette kan ha noen relevans i RHA- og RLA-rotter, som viser markant forskjellige behandlingsstiler og annen hypothalamus-hypofyse-adrenalakseaktivering som respons på aversive forhold (RLA-rotter viser en aktivering av denne aksen langt høyere enn RHA-rotter, se Carrasco et al., 2008; Díaz-Morán et al., 2012). Dette øker også muligheten for at stresshormoner (dvs. kortikosteroider) kan påvirke dopaminerg aktivitet i mPFC og andre hjernerom. Faktisk er RLA-rotter reaktive copere og viser hyperemotjonell oppførsel preget av hypomotilitet og frysing, mens RHA-rotter viser en proaktiv coping-oppførsel som er rettet mot å få kontroll over stressoren (Driscoll og Bättig, 1982; Willig et al., 1991; Escorihuela et al., 1999; Steimer og Driscoll, 2003; Giorgi et al., 2007). Selv om det er umulig å utelukke at dette kan forekomme hos seksuelt naive rotter (som aldri har interagert med en mottakelig kvinne før) og spesielt i seksuelt naive RLA-rotter (se ovenfor), er dette lite sannsynlig. I våre eksperimentelle forhold gjøres alt mulig for å unngå all slags stress (se avsnittet "Materialer og metoder"), og eksperimentene er organisert på en slik måte at menn ikke samhandler umiddelbart med hunnen, men bare etter 30 minutters eksponering for henne , hvor den målte økningen i dopamin er mye lavere enn den som oppstår under seksuell interaksjon. Hvis dopaminøkningen som ble funnet i mPFC (og i nucleus accumbens) av romerske rotter (seksuelt naive RHA- og RLA-rotter har basale nivåer av ekstracellulær dopamin i dialysatet fra mPFC og nucleus accumbens, veldig like) var virkelig sekundær til stress på grunn av eller taklingen av tilstedeværelsen av / interaksjon med hunnen: (i) dopaminøkningen ville blitt funnet mye høyere i den første tidsperioden når hannene ble satt i nærvær av hunnen og ikke senere, som funnet under kopiering; og (ii) dopaminøkning forventes å forsvinne eller reduseres kraftig etter anskaffelse av en stabil seksuell aktivitet, det vil si når læringsprosesser (inkludert mestring til nyhet) er fullført og bare spiller en mindre rolle i utførelsen av seksuell aktivitet, mens den derimot fortsetter å oppstå når seksuell aktivitet gjentas. Med andre ord øker ekstracellulær dopamin i mPFC (og i nucleus accumbens) alltid under kopiering, selv etter at seksuell oppførsel er blitt lært. Ytterligere studier er nødvendige for å avklare den funksjonelle rollen til denne økningen i dopaminaktivitet i mPFC (og i nucleus accumbens; se avsnittet "Introduksjon og referanser" der).
Avslutningsvis viser denne studien for første gang at tilstedeværelsen av, og enda mer, interaksjonen med en seksuelt mottakelig hunn fører til en økning av ekstracellulær dopamin og NA i dialysatet fra mPFC hos seksuelt naive (aldri eksponert for seksuelle stimuli) og seksuelt erfarne (som gjennomgikk fem innledende kopulasjonstester og viser stabil seksuell ytelse) RHA- og RLA-rotter, som viser markant forskjellige mestringsstiler som respons på aversive forhold og forskjellige mønstre av kopulerende atferd med en seksuelt mottakelig hunn også. Følgelig ble dopamin- og NA-konsentrasjoner funnet høyere i dialysatet fra seksuelt naive og erfarne RHA-rotter sammenlignet med deres RLA-motparter i både den forventede og fullbyrdelsesfasen av seksuell aktivitet. Disse resultatene kan delvis skyldes en dopaminerg og noradrenerg tone i mPFC hos RHA-rotter som er høyere enn hos RLA-rotter, som rapportert for dopamin i nucleus accumbens ( Sanna et al., 2015 ). Dessuten ble det også funnet høyere nivåer av ekstracellulær mPFC-dopamin og NA hos seksuelt erfarne RHA- og, i mindre grad, RLA-rotter sammenlignet med deres seksuelt naive motparter under basale forhold så vel som under appetitt- og konsummatoire faser av seksuell atferd. Dette antyder at seksuell erfaring induserer plastiske prosesser som ytterligere forsterker dopamin- og NA-nevrotransmisjon i mPFC, slik det er funnet for dopamin i nucleus accumbens hos begge romerske rottelinjene ( Sanna et al., 2015 ). Ovennevnte forskjeller i dopaminerg og noradrenerg nevrotransmisjon i mPFC hos de to romerske linjene kan spille en rolle ikke bare i de forskjellige mønstrene av seksuell atferd, men også i de forskjellige og ofte motsatte atferdstrekkene som karakteriserer disse to rottelinjene.
Forfatterbidrag
FS, AA, MRM, OG og MGC designet prosjektet. FS og JB designet, utført og analysert dataene fra seksuell atferd og mikrodialyse eksperimenter. MAP, OG og MGC utvalgte og avlette romerske rotter. FS, AA, MRM, OG og MGC overvåket studien. FS, AA, MRM, OG og MGC skrev manuskriptet. Alle forfattere diskutert resultatene og kommenterte manuskriptet.
Finansiering
Dette arbeidet ble delvis støttet av tilskudd fra det italienske departementet for universitet og forskning (MIUR) (Scientific Independence of Young Researchers, SIR 2014, Kode nr. RBSI14IUX7) til FS, fra den autonome regionen Sardinia (ARS) (LR 7 / 2007 , "Promotion of Scientific Research and Technological Innovation in Sardinia", European Social Fund, 2007-2013, Project Code No. CRP-59842) til OG, og fra University of Cagliari til AA, MRM, FS, OG og MGC.
Interessekonflikt
Forfatterne erklærer at forskningen ble utført i fravær av kommersielle eller økonomiske forhold som kunne tolkes som en potensiell interessekonflikt.
Erkjennelsene
Dr. Barbara Tuveri, University of Cagliari, for husdyr og omsorg.
Referanser
Afonso, VM, Sison, M., Lovic, V., og Fleming, AS (2007). Lesjoner i mediale prefrontale cortex hos hunnrotter påvirker seksuell og morslig atferd og deres sekvensielle organisering. Behav. Neurosci. 121, 515–526. doi: 10.1037/0735-7044.121.3.515
Agmo, A., og Villalpando, A. (1995). Sentralstimulerende midler letter seksuell atferd hos hannrotter med lesjoner i den mediale prefrontale cortex. Brain Res. 696, 187–193. doi: 10.1016/0006-8993(95)00853-i
Agmo, A., Villalpando, A., Picker, Z., og Fernández, H. (1995). Lesjoner i mediale prefrontale cortex og seksuell atferd hos hannrotter. Brain Res. 696, 177–186. doi: 10.1016/0006-8993(95)00852-h
Argiolas, A., og Melis, MR (1995). Nevromodulering av penis ereksjon: en oversikt over rollen til nevrotransmittere og nevropeptider. Prog. Neurobiol. 47, 235–255. doi: 10.1016/0301-0082(95)00020-8
Argiolas, A., og Melis, MR (2005). Sentral kontroll av penis ereksjon: rollen til den paraventrikulære kjernen i hypothalamus. Prog. Neurobiol. 76, 1–21. doi: 10.1016/j.pneurobio.2005.06.002
Argiolas, A., og Melis, MR (2013). Nevropeptider og sentral kontroll av seksuell atferd fra fortid til nåtid: en oversikt. Prog. Neurobiol. 108, 80–107. doi: 10.1016/j.pneurobio.2013.06.006
Balfour, ME, Brown, JL, Yu, L., og Coolen, LM (2006). Potensielle bidrag fra efferenter fra medial prefrontal cortex til nevral aktivering etter seksuell atferd hos hannrotter. Neuroscience 137, 1259–1276. doi: 10.1016/j.neuroscience.2005.11.013
Balfour, ME, Yu, L., og Coolen, LM (2004). Seksuell atferd og kjønnsrelaterte miljøsignaler aktiverer det mesolimbiske systemet hos hannrotter. Neuropsychopharmacology 29, 718–730. doi: 10.1038/sj.npp.1300350
Beloate, LN, Omrani, A., Adan, RA, Webb, IC, og Coolen, LM (2016). Aktivering av dopaminceller i det ventrale tegmentale området under seksuell atferd hos hannrotter regulerer nevroplastisitet og kryssensibilisering av d-amfetamin etter sexavholdenhet. J. Neurosci. 36, 9949–9961. doi: 10.1523/JNEUROSCI.0937-16.2016
Berridge, K., og Robinson, T. (1998). Hva er dopamins rolle i belønning: hedonisk påvirkning, belønningslæring eller insentivfremtredende rolle? Brain Res. Rev. 28, 309–369. doi: 10.1016/s0165-0173(98)00019-8
Bignami, G. (1965). Seleksjon for høye og lave rater av unngåelsesbetinging hos rotter. Anim. Behav. 13, 221–227. doi: 10.1016/0003-3472(65)90038-2
Broadhurst, PL, og Bignami, G. (1965). Korrelative effekter av psykogenetisk seleksjon: en studie av romerske høy- og lavunngåelsesstammer hos rotter. Behav. Res. Ther. 3, 273–280. doi: 10.1016/0005-7967(64)90033-6
Carboni, E., Silvagni, A., Vacca, C., og Di Chiara, G. (2006). Kumulativ effekt av noradrenalin- og dopaminbærerblokade på økning av ekstracellulær dopamin i nucleus accumbens-skallet, sengkjernen i stria terminalis og prefrontal cortex. J. Neurochem. 96, 473–481. doi: 10.1111/j.1471-4159.2005.03556.x
Carboni, E., Tanda, GL, Frau, R., og Di Chiara, G. (1990). Blokkering av noradrenalinbæreren øker ekstracellulære dopaminkonsentrasjoner i prefrontal cortex: bevis på at dopamin tas opp in vivo av noradrenerge terminaler. J. Neurochem. 55, 1067–1070. doi: 10.1111/j.1471-4159.1990.tb04599.x
Carlsson, A. (1975). «Reseptormediert kontroll av dopaminmetabolisme», i Pre- and Post-Synaptic Receptors , red. E. Usdin og WE Bunney (New York, NY: Marcel Deker), 49–65.
Carrasco, J., Márquez, C., Nadal, R., Tobeña, A., Fernández-Teruel, A., og Armario, A. (2008). Karakterisering av sentrale og perifere komponenter i hypothalamus-hypofyse-binyre-aksen i de innavlede romerske rottestammene. Psychoneuroendocrinology 33, 437–445. doi: 10.1016/j.psyneuen.2008.01.001
Coppens, CM, de Boer, SF, Steimer, T., og Koolhaas, JM (2012). Impulsivitet og aggressiv atferd hos romerske rotter med høy og lav unngåelse: baselineforskjeller og endringer indusert av sosialt stress hos ungdom. Physiol. Behav. 105, 1156–1160. doi: 10.1016/j.physbeh.2011.12.013
Corda, MG, Lecca, D., Piras, G., Di Chiara, G., og Giorgi, O. (1997). Biokjemiske parametere for dopaminerg og GABAerg nevrotransmisjon i sentralnervesystemet hos rotter med Roman høy og Roman lav unngåelse. Behav. Genet. 27, 527–536. doi: 10.1023/A:1021452814574
Corda, MG, Piras, G., Piludu, MA, og Giorgi, O. (2014). Differensielle effekter av frivillig etanolforbruk på dopaminproduksjon i nucleus accumbens-skallet hos romerske rotter med høy og lav unngåelse: en atferdsmessig og hjerne-mikrodialysestudie. World J. Neurosci. 4, 279–292. doi: 10.4236/wjns.2014.43031
Dahlstrom, A., og Fuxe, K. (1964). Bevis for eksistensen av monoaminholdige nevroner i sentralnervesystemet. I. Demonstrasjon av monoaminer i cellekroppene til hjernestammenevroner. Acta Physiol. Scand. Suppl. 62, 1–54.
Damsma, G., Pfaus, J., Wenkstern, D., Phillips, A., og Fibiger, H. (1992). Seksuell atferd øker dopaminoverføring i nucleus accumbens og striatum hos hannrotter: sammenligning med nyhet og bevegelse. Behav. Neurosci. 106, 181–191. doi: 10.1037/0735-7044.106.1.181
D'Angio, M., Serrano, A., Driscoll, P., og Scatton, B. (1988). Stressfulle miljøstimuli øker ekstracellulære DOPAC-nivåer i prefrontal cortex hos hypoemosjonelle (romersk høy unngåelsesgrad), men ikke hyperemosjonelle (romersk lav unngåelsesgrad) rotter. En in vivo voltammetrisk studie. Brain Res. 451, 237–247. doi: 10.1016/0006-8993(88)90768-8
Davis, JF, Loos, M., Di Sebastiano, AR, Brown, JL, Lehman, MN, og Coolen, LM (2010). Lesjoner i den mediale prefrontale cortex forårsaker maladaptiv seksuell atferd hos hannrotter. Biol. Psychiatry 67, 1199–1204. doi: 10.1016/j.biopsych.2009.12.029
Díaz-Morán, S., Palència, M., Mont-Cardona, C., Cañete, T., Blázquez, G., Martínez-Membrives, E., et al. (2012). Mestringsstil og stresshormonresponser hos genetisk heterogene rotter: sammenligning med de romerske rottestammene. Oppførsel. Brain Res. 228, 203-210. doi: 10.1016/j.bbr.2011.12.002
Driscoll, P., og Bättig, K. (1982). «Atferdsmessige, emosjonelle og nevrokjemiske profiler hos rotter selektert for ekstreme forskjeller i aktiv, toveis unngåelsesevne», i Genetics of the Brain , red. I. Lieblich (Amsterdam: Elsevier), 95–123.
Dunlop, BW, og Nemeroff, CB (2007). Dopamins rolle i patofysiologien til depresjon. Arch. Gen. Psychiatry 64, 327–337. doi: 10.1001/archpsyc.64.3.327
Escorihuela, RM, Fernández-Teruel, A., Gil, L., Aguilar, R., Tobeña, A., og Driscoll, P. (1999). Innavlede romerske rotter med høy og lav unngåelse: forskjeller i angst, nyhetssøkende atferd og skyttelboksatferd. Physiol. Behav. 67, 19–26. doi: 10.1016/S0031-9384(99)00064-5
Everitt, BJ (1990). Seksuell motivasjon: en nevral og atferdsmessig analyse av mekanismene som ligger til grunn for appetitt- og kopulatoriske responser hos hannrotter. Neurosci. Biobehav. Rev. 14, 217–232. doi: 10.1016/s0149-7634(05)80222-2
Everitt, BJ, og Robbins, TW (2005). Nevrale forsterkningssystemer for rusavhengighet: fra handlinger til vaner til tvang. Nat. Neurosci. 8, 1481–1489. doi: 10.1038/nn1579
Fadda, F., Argiolas, A., Melis, MR, Tissari, AH, Onali, PL, og Gessa, GL (1978). Stressindusert økning i nivåer av 3,4-dihydroksyfenyleddiksyre (DOPAC) i hjernebarken og n.accumbens: reversering med diazepam. Life Sci. 23, 2219–2224. doi: 10.1016/b978-0-08-023768-8.51934-4
Fattore, L., Piras, G., Corda, MG, og Giorgi, O. (2009). De romerske rottelinjene med høy og lav unngåelse er forskjellige i tilegnelse, vedlikehold, utryddelse og gjeninnsetting av intravenøs kokain-selvadministrering. Neuropsychopharmacology 34, 1091–1101. doi: 10.1038/npp.2008.43
Febo, M. (2011). Prefrontal celleavfyring hos hannrotter under tilnærming til seksuelt mottakelige hunnrotter: interaksjoner med kokain. Synapse 65, 271–277. doi: 10.1002/syn.20843
Fernández-Guasti, A., Omaña-Zapata, I., Luján, M., og Condés-Lara, M. (1994). Virkninger av isjiasnerveligatur på seksuell atferd hos seksuelt erfarne og uerfarne hannrotter: effekter av frontal poldekortikasjon. Physiol. Behav. 55, 577–581. doi: 10.1016/0031-9384(94)90119-8
Fernández-Teruel, A., Driscoll, P., Gil, L., Aguilar, R., Tobeña, A., og Escorihuela, RM (2002). Varige effekter av miljøberikelse på nyhetssøking, sakkarin- og etanolinntak hos to rottelinjer (RHA/Verh og RLA/Verh) med ulik insentivsøkende atferd. Pharmacol. Biochem. Behav. 73, 225–231. doi: 10.1016/s0091-3057(02)00784-0
Giménez-Llort, L., Cañete, T., Guitart-Masip, M., Fernández-Teruel, A. og Tobeña, A. (2005). To karakteristiske apomorfin-induserte fenotyper hos romerske høy- og lavunngåelsesrotter. Physiol. Oppførsel. 86, 458–466. doi: 10.1016/j.physbeh.2005.07.021
Giorgi, O., Lecca, D., Piras, G., og Corda, MG (2005). Differensiell aktivering av dopaminfrigjøring i kjernen og skallet til nucleus accumbens etter akutte eller gjentatte amfetamininjeksjoner: en sammenlignende studie i de romerske rottelinjene med høy og lav unngåelse. Neuroscience 135, 987–998. doi: 10.1016/j.neuroscience.2005.06.075
Giorgi, O., Lecca, D., Piras, G., Driscoll, P., og Corda, MG (2003a). Dissosiasjon mellom mesokortikal dopaminfrigjøring og fryktrelatert atferd hos to psykogenetisk utvalgte rottelinjer som har forskjellige mestringsstrategier for aversive tilstander. Eur. J. Neurosci. 17, 2716–2726. doi: 10.1046/j.1460-9568.2003.02689.x
Giorgi, O., Piras, G., Lecca, D., Hansson, S., Driscoll, P., og Corda, MG (2003b). Differensielle nevrokjemiske egenskaper ved sentral serotonerg transmisjon hos romerske rotter med høy og lav unngåelse. J. Neurochem. 86, 422–431. doi: 10.1046/j.1471-4159.2003.01845.x
Giorgi, O., Orlandi, M., Escorihuela, RM, Driscoll, P., Lecca, D., og Corda, MG (1994). GABAerg og dopaminerg transmisjon i hjernen til rotter med romersk høy og romersk lav unngåelse. Brain Res. 638, 133–138. doi: 10.1016/0006-8993(94)90642-4
Giorgi, O., Piras, G., og Corda, MG (2007). De psykogenetisk utvalgte romerske rottelinjene med høy og lav unngåelse: en modell for å studere individuell sårbarhet for rusavhengighet. Neurosci. Biobehav. Rev. 31, 148–163. doi: 10.1016/j.neubiorev.2006.07.008
Goto, Y., og Grace, AA (2005). Dopaminerg modulering av limbisk og kortikal drivkraft i nucleus accumbens for målrettet atferd. Nat. Neurosci. 8, 805–812. doi: 10.1038/nn1471
Gresch, PJ, Sved, AF, Zigmond, MJ, og Finlay, JM (1995). Lokal påvirkning av endogent noradrenalin på ekstracellulært dopamin i medial prefrontal cortex hos rotter. J. Neurochem. 65, 111–116. doi: 10.1046/j.1471-4159.1995.65010111.x
Hernández-Gonzáles, M., Guevara, MA, Cervantes, M., Morali, G., og Corsi-Cabrera, M. (1998). Karakteristiske frekvensbånd for kortikofrontal EEG under seksuell interaksjon hos hannrotter som et resultat av faktoranalyse. J. Physiology 92, 43–50. doi: 10.1016/s0928-4257(98)80022-3
Hernández-Gonzáles, M., Prieto-Beracoechea, CA, Arteaga-Silva, M., og Guevara, MA (2007). Ulik funksjonalitet i medial og orbital prefrontal cortex under en seksuelt motivert oppgave hos rotter. Physiol. Behav. 90, 450–458. doi: 10.1016/j.physbeh.2006.10.006
Horn, AS (1973). Struktur-aktivitetsforhold for hemming av katekolaminopptak i synaptosomer fra noradrenerge og dopaminerge nevroner i rottehjernehomogenater. Br. J. Pharmacol. 47, 332–338. doi: 10.1111/j.1476-5381.1973.tb08331.x
Hull, EM, Du, J., Lorrain, DS, og Matuszewich, L. (1995). Ekstracellulær dopamin i det mediale preoptiske området: implikasjoner for seksuell motivasjon og hormonell kontroll av kopulasjon. J. Neurosci. 15, 7465–7471.
Hull, EM, Lorrain, DS, Du, J., Matuszewich, L., Lumley, LA, Putnam, SK, et al. (1999). Hormon-nevrotransmitter-interaksjoner i kontrollen av seksuell atferd. Behav. Brain Res. 105, 105–116. doi: 10.1016/s0166-4328(99)00086-8
Hull, EM, Weber, MS, Eaton, RC, Dua, R., Markowski, VP, Lumley, L., et al. (1991). Dopaminreseptorer i det ventrale tegmentale området påvirker motoriske, men ikke motivasjons- eller refleksive, komponenter i kopulasjon hos hannrotter. Brain Res. 554, 72–76. doi: 10.1016/0006-8993(91)90173-S
Ikemoto, S., og Panksepp, J. (1999). Rollen til nucleus accumbens dopamin i motivert atferd: en samlende tolkning med spesiell henvisning til belønningssøkende handlinger. Brain Res. Rev. 31, 6–41. doi: 10.1016/S0165-0173(99)00023-5
Kakeyama, M., Sone, H., Miyabara, Y., og Tohyama, C. (2003). Perinatal eksponering for 2,3,7,8-tetraklordibenzo-p-dioksin endrer aktivitetsavhengig uttrykk av BDNF mRNA i neocortex og seksuell atferd hos hannrotter i voksen alder. Neurotoxicology 24, 207–217. doi: 10.1016/S0161-813x(02)00214-0
Lecca, D., Piras, G., Driscoll, P., Giorgi, O., og Corda, MG (2004). En differensiell aktivering av dopaminproduksjon i skallet og kjernen til nucleus accumbens er assosiert med motoriske responser på avhengighetsskapende stoffer: en hjernedialysestudie hos romerske rotter med høy og lav unngåelse. Neuropharmacology 46, 688–699. doi: 10.1016/j.neuropharm.2003.11.011
Manzo, L., Gómez, MJ, Callejas-Aguilera, JE, Donaire, R., Sabariego, M., Fernández-Teruel, A., et al. (2014a). Forholdet mellom etanolpreferanse og sensasjon/nyhetssøking. Physiol. Oppførsel. 133, 53–60. doi: 10.1016/j.physbeh.2014.05.003
Manzo, L., Gómez, MJ, Callejas-Aguilera, JE, Fernández-Teruel, A., Papini, MR og Torres, C. (2014b). Anti-angst selvmedisinering indusert av insentivtap hos rotter. Physiol. Oppførsel. 123, 86–92. doi: 10.1016/j.physbeh.2013.10.002
Masana, M., Bortolozzi, A., og Artigas, F. (2011). Selektiv forsterkning av mesokortikal dopaminerg transmisjon med noradrenerge legemidler: terapeutiske muligheter ved schizofreni. Int. J. Neuropsychopharmacol. 14, 53–68. doi: 10.1017/s1461145710000908
Meisel, RL, og Sachs, BD (1994). «Fysiologien til mannlig seksuell atferd», i The Physiology of Reproduction , bind 2, 2. utg., red. E. Knobil og J. Neil (New York, NY: Raven Press), 3–96.
Melis, MR, og Argiolas, A. (1995). Dopamin og seksuell atferd. Neurosci. Biobehav. Rev. 19, 19–38. doi: 10.1016/0149-7634(94)00020-2
Melis, MR, og Argiolas, A. (2011). Sentral kontroll av penis ereksjon: en ny vurdering av oksytocins rolle og dets interaksjon med dopamin og glutaminsyre hos hannrotter. Neurosci. Biobehav. Rev. 35, 939–955. doi: 10.1016/j.neubiorev.2010.10.014
Melis, MR, Melis, T., Cocco, C., Succu, S., Sanna, F., Pillolla, G., et al. (2007). Oksytocin injisert i det ventrale tegmentale området induserer penis ereksjon og øker ekstracellulær dopamin i nucleus accumbens og paraventrikulærkjerne i hypothalamus hos hannrotter. Eur. J. Neurosci. 26, 1026–1035. doi: 10.1111/j.1460-9568.2007.05721.x
Melis, MR, Succu, S., Cocco, C., Caboni, E., Sanna, F., Boi, A., et al. (2010). Oksytocin induserer ereksjon når det injiseres i ventral subikulum: rollen til nitrogenoksid og glutaminsyre. Neuropharmacology 58, 1153–1160. doi: 10.1016/j.neuropharm.2010.02.008
Melis, MR, Succu, S., Mascia, MS, Cortis, L., og Argiolas, A. (2003). Ekstracellulær dopamin øker i den paraventrikulære kjernen hos hannrotter under seksuell aktivitet. Eur. J. Neurosci. 17, 1266–1272. doi: 10.1046/j.1460-9568.2003.02558.x
Melis, MR, Succu, S., Sanna, F., Boi, A., og Argiolas, A. (2009). Oksytocin injisert i ventral subikulum eller den posteromediale kortikale kjernen i amygdala induserer penis ereksjon og øker ekstracellulære dopaminnivåer i nucleus accumbens hos hannrotter. Eur. J. Neurosci. 30, 1349–1357. doi: 10.1111/j.1460-9568.2009.06912.x
Moreno, M., Cardona, D., Gómez, MJ, Sánchez-Santed, F., Tobeña, A., Fernández-Teruel, A., et al. (2010). Impulsivitetskarakterisering i romerske rottestammer med høy og lav unngåelse: atferdsmessige og nevrokjemiske forskjeller. Neuropsychopharmacology 35, 1198–1208. doi: 10.1038/npp.2009.224
Oliveras, I., Río-Álamos, C., Cañete, T., Blázquez, G., Martínez-Membrives, E., Giorgi, O., et al. (2015). Prepulshemming predikerer romlig arbeidshukommelsesytelse hos innavlede romerske rotter med høy og lav unngåelse og hos genetisk heterogene NIH-HS-rotter: relevans for å studere pre-oppmerksomme og kognitive anomalier ved schizofreni. Front. Behav. Neurosci. 9:213. doi: 10.3389/fnbeh.2015.00213
Paxinos, G., og Watson, C. (2004). Rottehjernen i stereotaksiske koordinater , 4. utg., New York: Academic Press.
Pfaus, JG (2010). Dopamin: hjalp menn med å parre seg i minst 200 millioner år: teoretisk kommentar til Kleitz-Nelson et al. (2010). Behav. Neurosci. 124, 877–880. doi: 10.1037/a0021823
Pfaus, JG, Damsma, G., Nomikos, GG, Wenkstern, DG, Blaha, CD, Phillips, AG, et al. (1990). Seksuell atferd forsterker sentral dopaminoverføring hos hannrotter. Brain Res. 530, 345–348. doi: 10.1016/0006-8993(90)91309-5
Pfaus, JG, og Everitt, BJ (1995). «Seksuell atferds psykofarmakologi», i Psychopharmacology: The Fourth Generation of Progress , red. F.E. Bloom og DJ. Kupfer (New York, NY: Raven Press), 742–758.
Pfaus, JG, og Phillips, AG (1991). Dopamins rolle i forventningsfulle og konsumerende aspekter ved seksuell atferd hos hannrotter. Behav. Neurosci. 105, 727–747. doi: 10.1037/0735-7044.105.5.727
Piras, G., Giorgi, O., og Corda, MG (2010). Effekter av antidepressiva på prestasjonen i tvungen svømmetest hos to psykogenetisk utvalgte rottelinjer som har forskjellige mestringsstrategier for aversive tilstander. Psychopharmacology 211, 403–414. doi: 10.1007/s00213-010-1904-x
Piras, G., Piludu, MA, Giorgi, O., og Corda, MG (2014). Effekter av kronisk antidepressiv behandling i en antatt genetisk modell av sårbarhet (romerske rotter med lav unngåelse) og resistens (romerske rotter med høy unngåelse) mot stressindusert depresjon. Psychopharmacology 231, 43–53. doi: 10.1007/s00213-013-3205-7
Pitchers, KK, Frohmader, KS, Vialou, V., Mouzon, K., Nestler, EJ, Lehman, MN, et al. (2010). ΔFosB i nucleus accumbens er kritisk for å forsterke effektene av seksuell belønning. Genes Brain Behav. 9, 831–840. doi: 10.1111/j.1601-183X.2010.00621.x
Pitchers, KK, Coppens, CM, Beloate, LN, Fuller, J., Van, S., Frohmader, KS, et al. (2014). Endogen opioidindusert nevroplastisitet av dopaminerge nevroner i det ventrale tegmentale området påvirker naturlig og opioidbelønning. J. Neurosci. 34, 8825–8836. doi: 10.1523/JNEUROSCI.0133-14.2014
Pitchers, KK, Vialou, V., Nestler, EJ, Laviolette, SR, Lehman, MN, og Coolen, LM (2013). Naturlige og medikamentelle belønninger virker på vanlige nevrale plastisitetsmekanismer med ΔFosB som en nøkkelmediator. J. Neurosci. 33, 3434–3442. doi: 10.1523/JNEUROSCI.4881-12.2013
Pleim, E., Matochik, J., Barfield, R., og Auerbach, S. (1990). Korrelasjon mellom dopaminfrigjøring i nucleus accumbens og maskulin seksuell atferd hos rotter. Brain Res. 524, 160–163. doi: 10.1016/0006-8993(90)90507-8
Robbins, TW, og Arnsten, AFT (2009). Nevropsykofarmakologien til fronto-eksekutiv funksjon: monoaminerg modulering. Ann. Rev. Neurosci. 32, 267–287. doi: 10.1146/annurev.neuro.051508.135535
Sabariego, M., Morón, I., Gómez, MJ, Donaire, R., Tobeña, A., Fernández-Teruel, A., et al. (2013). Incentivtap og hippocampusgenuttrykk hos innavlede romerske høy- (RHA-I) og romerske lav- (RLA-I) unngåelsesrotter. Behav. Brain Res. 257, 62–70. doi: 10.1016/j.bbr.2013.09.025
Sachs, BD (2000). Kontekstuelle tilnærminger til fysiologi og klassifisering av erektil funksjon, erektil dysfunksjon og seksuell opphisselse. Neurosci. Biobehav. Rev. 24, 541–560. doi: 10.1016/S0149-7634(00)00022-1
Sachs, BD, Akasofu, K., Citro, JK, Daniels, SB, og Natoli, JH (1994). Ikke-kontaktstimulering fra brunsthunner fremkaller penis ereksjon hos rotter. Physiol. Behav. 55, 1073–1079. doi: 10.1016/0031-9384(94)90390-5
Sachs, BD, og Barfield, RJ (1976). Funksjonell analyse av maskulin kopulatorisk atferd hos rotter. Adv. Stud. Behav. 7, 91–154. doi: 10.1016/s0065-3454(08)60166-7
Salamone, JD, Pardo, M., Yohn, SE, López-Cruz, L., San Miguel, N., og Correa, M. (2016). Mesolimbisk dopamin og regulering av motivert atferd. Curr. Top. Behav. Neurosci. 27, 231–257. doi: 10.1007/7854_2015_383
Sanna, F., Corda, MG, Melis, MR, Piludu, MA, Giorgi, O., og Argiolas, A. (2014a). Hannrotter av romersk type med høy og lav unngåelse viser ulike mønstre av kopulatorisk atferd: sammenligning med Sprague Dawley-rotter. Physiol. Behav. 127, 27–36. doi: 10.1016/j.physbeh.2014.01.002
Sanna, F., Piludu, MA, Corda, MG, Argiolas, A., Giorgi, O., og Melis, MR (2014b). Dopamin er involvert i de ulike mønstrene av kopulatorisk atferd hos romerske rotter med høy og lav unngåelse: studier med apomorfin og haloperidol. Pharmacol. Biochem. Behav. 124, 211–219. doi: 10.1016/j.pbb.2014.06.012
Sanna, F., Piludu, MA, Corda, MG, Melis, MR, Giorgi, O., og Argiolas, A. (2015). Dopamins involvering i forskjellene i seksuell atferd mellom romerske rotter med høy og lav unngåelse: en intracerebral mikrodialysestudie. Behav. Brain Res. 281, 177–186. doi: 10.1016/j.bbr.2014.12.009
Scatton, B., D'Angio, M., Driscoll, P., og Serrano, A. (1988). En in vivo voltammetrisk studie av responsen til mesokortikale og mesoaccumbens dopaminerge nevroner på miljøstimuli i rottestammer med forskjellige nivåer av emosjonalitet. Ann. NY Acad. Sci. 537, 124–137. doi: 10.1111/j.1749-6632.1988.tb42101.x
Steimer, T., og Driscoll, P. (2003). Divergerende stressresponser og mestringsstiler hos psykogenetisk selekterte romerske rotter med høy (RHA) og lav (RLA) unngåelse: atferdsmessige, nevroendokrine og utviklingsmessige aspekter. Stress 6, 87–100. doi: 10.1080/1025389031000111320
Succu, S., Sanna, F., Argiolas, A., og Melis, MR (2011). Oksytocin injisert i det hippocampale ventralsubikulum induserer penis ereksjon hos hannrotter ved å øke glutamaterg nevrotransmisjon i det ventrale tegmentale området. Neuropharmacology 61, 181–188. doi: 10.1016/j.neuropharm.2011.03.026
Succu, S., Sanna, F., Cocco, C., Melis, T., Boi, A., Ferri, GL, et al. (2008). Oksytocin induserer penis ereksjon når det injiseres i det ventrale tegmentale området hos hannrotter: rollen til nitrogenoksid og syklisk GMP. Eur. J. Neurosci. 28, 813–821. doi: 10.1111/j.1460-9568.2008.06385.x
Succu, S., Sanna, F., Melis, T., Boi, A., Argiolas, A., og Melis, MR (2007). Stimulering av dopaminreseptorer i den paraventrikulære kjernen i hypothalamus hos hannrotter induserer penis ereksjon og øker ekstracellulær dopamin i nucleus accumbens: involvering av sentralt oksytocin. Neuropharmacology 52, 1034–1043. doi: 10.1016/j.neuropharm.2006.10.019
Thierry, AM, Tassin, JP, Blanc, G., og Glowinski, J. (1976). Selektiv aktivering av mesokortikalt DA-system ved stress. Nature 263, 242–244. doi: 10.1038/263242a0
Wenkstern, D., Pfaus, J., og Fibiger, H. (1993). Dopaminoverføring øker i nucleus accumbens hos hannrotter under deres første eksponering for seksuelt mottakelige hunnrotter. Brain Res. 618, 41–46. doi: 10.1016/0006-8993(93)90426-N
Westernik, BHC, De Boer, P., De Vries, JB, og Long, S. (1998). Antipsykotiske legemidler induserer lignende effekter på frigjøringen av dopamin og noradrenalin i den mediale prefrontale cortex i rottehjernen. Eur. J. Pharmacol. 361, 27–33. doi: 10.1016/s0014-2999(98)00711-0
Willig, F., M'Harzi, M., Bardelay, C., Viet, D., og Delacour, J. (1991). Romerske stammer som en psykogenetisk modell for studiet av arbeidshukommelse: atferdsmessige og biokjemiske data. Pharmacol. Biochem. Behav. 40, 7–16. doi: 10.1016/0091-3057(91)90313-q
Zeier, H., Baettig, K., og Driscoll, P. (1978). Tilegnelse av DRL-20-atferd hos hann- og hunnrotter, romerske rotter med høy og lav unngåelse. Physiol. Behav. 20, 791–793. doi: 10.1016/0031-9384(78)90307-4
Nøkkelord: seksuell oppførsel, dopamin, noradrenalin, mPFC, mikrodialyse, RHA og RLA rotter
Citation: Sanna F, Bratzu J, Piludu MA, Corda MG, Melis MR, Giorgi O og Argiolas A (2017) Dopamin, Noradrenalin og forskjeller i seksuell adferd mellom romerske høye og lave unngåelse Mannrotter: En mikrodialysestudie i medial prefrontal cortex . Front. Behav. Neurosci. 11: 108. doi: 10.3389 / fnbeh.2017.00108
Mottatt: 22 desember 2016; Godta: 19 mai 2017;
Publisert: 07 June 2017.