Neurosci Biobehav Rev. 2011 jan.;35(3):939-55. doi: 10.1016/j.neubiorev.2010.10.014. Epub 2. nov. 2010.
- 1Bernard B. Brodie Institutt for nevrovitenskap, Universitetet i Cagliari, Cittadella Universitaria, 09042 Monserrato, CA, Italia. [e-postbeskyttet]
ABSTRAKT
Oksytokin er en potent inducer av penile ereksjon når den injiseres i sentralnervesystemet. Hos mannlige rotter er det mest følsomme hjerneområdet for den pro-erektile effekten av oksytocin den paraventrikulære kjernen til hypothalamus. Denne kjernen og omgivende områder inneholder cellelegemet av alle oksytocinergiske nevroner som projiserer til ekstrahypothalamiske hjerneområder og ryggmargen. Denne undersøkelsen viser at oksytocin induserer penile ereksjon også når det injiseres i noen av disse områdene (f.eks. Ventral tegmental område, ventral subikulum av hippocampus, posteromedial kortikalkjernen i amygdala og thoracolumbas ryggmargen). Mikroinjeksjonsstudier kombinert med intra-cerebral mikrodialyse og dobbelt immunofluorescensstudier antyder at oksytocin i disse områdene aktiverer mesolimbiske dopaminerge neuroner direkte eller indirekte (hovedsakelig gjennom glutaminsyre). Dopamin frigjort i nucleus accumbens aktiverer i sin tur nevrale veier som fører til aktivering av dopaminerge nevroner i den paraventrikulære kjernen. Dette aktiverer ikke bare oksytocinergiske nevroner som projiserer til ryggmargen og formidler penis ereksjon, men også de som projiserer til de ovenfor nevnte ekstrahypothalamiske områdene, modulerer direkte eller indirekte (gjennom glutaminsyre) aktiviteten til mesolimbiske dopaminerge neuroner som styrer motivasjon og belønning. Sammen kan disse nevrale banene utgjøre en kompleks hypotetisk krets, som ikke bare spiller en rolle i forbruksfasen av seksuell aktivitet (erektil funksjon og kopiering), men også i de motiverende og givende aspektene av den forventede fasen av seksuell oppførsel.
1.Introduction
Penisereksjon er en mannlig seksuell respons som spiller en nøkkelrolle i reproduksjonen hos pattedyr, inkludert mennesker, og som også kan observeres i sammenhenger som er forskjellige fra de som er strengt tatt relatert til reproduksjon. Avhengig av konteksten penisereksjonen oppstår i, deltar forskjellige sentrale og perifere nevrale og/eller humorale mekanismer i reguleringen (se Meisel og Sachs, 1994; Argiolas og Melis, 1995, 2004, 2005; Sachs, 2000, 2007; McKenna, 2000; Giuliano og Rampin, 2000, 2004; Andersson, 2001; Melis og Argiolas, 1995a, 2003; Hull et al., 2002). Blant sentrale nevrotransmittere og nevropeptider som kontrollerer penisereksjon, er de mest kjente dopamin, serotonin, eksitatoriske aminosyrer, nitrogenoksid, adrenokortikotropin, oksytocin og opioidpeptider . De kan fremme eller hemme penisereksjon ved å virke i flere hjerneområder, dvs. det mediale preoptiske området, den paraventrikulære kjernen i hypothalamus, det ventrale tegmentale området, hippocampus, amygdala, kjernen i stria terminalis, nucleus accumbens, medulla oblongata og ryggmargen (tabell 1) (se Meisel og Sachs, 1994; Witt og Insel, 1994; Stancampiano et al., 1994; Argiolas og Melis, 1995, 2005; Argiolas, 1999; Bancila et al., 2002; Giuliano og Rampin, 2000, McKenna, 2000; Andersson, 2001; Hull et al., 2002; Coolen et al., 2004).
Oksytokin, det neurohypofyseale peptidet som er kjent for sin hormonelle rolle i laktasjon og fødsel, er tilstede hos kvinner og menn, ikke bare i nevroner med cellekroppar som ligger i de paraventrikulære og supraoptiske kjernene i hypothalamus som projiserer til nevrohypofysen, men også i nevroner som projiserer fra den paraventrikulære kjernen og omkringliggende strukturer til ekstrahypothalamiske hjerneområder (dvs. septumet, det ventrale tegmentale området, hippocampus, amygdala, medulla oblongata og ryggmargen). Disse nevronene antas å være involvert i en rekke sentrale funksjoner, for eksempel minne, læring, tilknyttede og sosio-seksuelle atferd, inkludert penis ereksjon og copulatorisk oppførsel (se Buijs, 1978, Sofroniew, 1983, Argiolas og Gessa, 1991; Pedersen et al. , 1992; Carter, 1992; Wagner og Clemens, 1993; Ivell og Russel, 1995; Carter et al., 1997; Tang et al., 1998; Veronneau-Longueville et al., 1999). Faktisk tillater oxytocin erektil funksjon og mannlig seksuell oppførsel hos mus, rotter, kaniner og aper (se Argiolas og Gessa, 1991; Carter, 1992; Pedersen et al., 1992; Argiolas and Melis, 1995, 2004; Argiolas, 1999). Dette kan også forekomme hos mennesker, siden plasmaoksytokin økes ved seksuell stimuli, spesielt ved utløsning (Carmichael et al., 1987, Murphy et al., 1987) og ved manipulering av bryst og kjønnsorganer, som vanligvis forekommer under seksuell bruk samleie (Tindall, 1974).
En tilretteleggende effekt av oksytocin på mannlig seksuell oppførsel ble først demonstrert ved evnen til intravenøs oksytocin til å redusere latensen til den første utløsning og å senke seksuell utmattelse av mannlige kaniner parret med mottakelige kvinner (Melin og Kihlstrom, 1963). Imidlertid ble seksytiske virkninger av oksytocin definitivt anerkjent bare i åttitallet. Oksytokin gitt sentralt i nanogrammene ble da funnet i stand til å indusere penis ereksjon (Argiolas et al., 1985, 1986) og for å forbedre copulatorisk oppførsel (Arletti et al., 1985) hos hannrotter og for å øke lordose hos hunrotter (Arletti og Bertolini, 1985; Caldwell et al., 1986), tilsynelatende ved å virke på oksytocinergreceptorer av uterintype (se Argiolas og Melis, 1995, 2004; Argiolas, 1999; Melis og Argiolas, 2003; og referanser deri). Oksytokin forbedrer seksuell oppførsel, ikke bare hos seksuelt potente mannlige rotter (Arletti et al., 1985), men også hos eldre hannrotter (Arletti et al., 1990) og i dominerende, men ikke underordnede, male ekornesapene (Winslow og Insel , 1991).
Den pro-erektile effekten av oksytocin er testosteronavhengig, siden den oppheves ved hypofysektomi og kastrering, og gjenopprettes ved tilskudd med testosteron eller dets metabolitter, østradiol og 5_-dihydrotestosteron gitt sammen (Melis et al., 1994a). Det mest følsomme hjerneområdet for induksjon av penisereksjon med oksytocin er den paraventrikulære kjernen i hypothalamus (Melis et al., 1986), hvorfra alle ekstrahypothalamiske oksytocinerge fremspring stammer (se ovenfor). Her ble det funnet at oksytocin kunne indusere penisereksjon (og gjesping) når det injiseres i doser så lave som 3 pmol (se avsnitt 2.1 nedenfor). Oksytocin induserte også ereksjon av penis når det ble injisert bilateralt i CA1-feltet i hippocampus, men ikke i dorsal subikulum (se avsnitt 2.3 nedenfor), lateral septum, nucleus caudatus, det mediale preoptiske området, den ventromediale nucleus i hypothalamus og den supraoptiske nucleus (Melis et al., 1986). Når det gjelder mekanismen som oksytocin virker ved i den paraventrikulære nucleus for å indusere denne seksuelle responsen, tyder en rekke studier på at oksytocin aktiverer sine egne nevroner. I tråd med denne hypotesen øker seksuell interaksjon FOS, genproduktet av det umiddelbare tidlige genet c-fos i paraventrikulære oksytocinerge nevroner som projiserer til ryggmargen, som er involvert i kontrollen av penis ereksjon (se Witt og Insel, 1994 og referanser deri), og seksuell impotens (f.eks. manglende evne hos en voksen hannrotte til å kopulere med en ovariektomisert østrogen-progesteronprimet reseptiv hunnrotte) har blitt assosiert hos hannrotter med lave nivåer av oksytocin mRNA i den paraventrikulære kjernen i hypothalamus (Arletti et al., 1997).
Hvorvidt oksytocin påvirker den antisipatoriske fasen eller den konsumatoriske fasen av seksuell atferd er uklart for øyeblikket . Ettersom oksytocin induserer ereksjon av penis, og hovedeffekten av oksytocin på kopulatorisk atferd er en reduksjon i post-ejakulasjonsintervallet hos hannrotter (Arletti et al., 1985), er det rimelig å anta at peptidet forbedrer seksuell ytelse. Ettersom oksytocin også øker sosioseksuell interaksjon (se Pedersen et al., 1992; Carter et al., 1997; Ivell og Russel, 1995), og oksytocinreseptorantagonister forhindrer ikke-kontakt ereksjoner (Melis et al., 1999a), som anses som en indeks for seksuell opphisselse (se Sachs, 1997, 2000, 2007; Melis et al., 1998, 1999b og referanser deri), kan en mulig rolle for oksytocin i seksuell opphisselse og seksuell motivasjon ikke utelukkes.
Denne oversikten oppsummerer publiserte og upubliserte resultater fra nyere studier, som viser at oksytocin induserer ereksjon ikke bare når det injiseres i den paraventrikulære kjernen i hypothalamus, men også i andre ekstrahypothalamiske hjerneområder, som det ventrale tegmentale området (Melis et al., 2007, 2009a; Succu et al., 2008), det ventrale subikulumet i hippocampus og den bakre kjernen i amygdala (Melis et al., 2009b, 2010), som er viktige bestanddeler av det limbiske systemet og antas å spille en nøkkelrolle i motivasjons- og belønningsprosesser. Disse studiene viser at oksytocin deltar i nevrale kretser, som inkluderer andre nevrotransmittere, som dopamin og glutaminsyre, og andre hjerneområder enn den paraventrikulære kjernen, f.eks. det ventrale tegmentale området, nucleus accumbens, hippocampus og områder som ennå ikke er identifisert. Disse kretsene medierer sannsynligvis en interaksjon mellom det mesolimbiske og det incerto-hypothalamiske dopaminerge systemet, og spiller en rolle ikke bare i den fullbyrdende fasen av mannlig seksuell atferd (f.eks. penis ereksjon og kopulering), men også i seksuell motivasjon og seksuell opphisselse, og gir dermed et nevralt substrat for å forklare de motiverende og givende egenskapene til seksuell aktivitet.
2. Oksytokin påvirker penile ereksjon ved å virke i forskjellige hjerneområder
2.1. Den hypotalamus paraventrikulære kjernen
Som nevnt ovenfor ble den paraventrikulære kjernen til hypothalamus raskt identifisert som hjerneområdet mest følsomt for den pro-erektile effekten av oksytocin. Når det injiseres ensidet i denne kjernen, ble oksytocin funnet aktiv ved doser så lave som 3 ng (3 pmol) (Melis et al., 1986). Struktur-aktivitetsrelasjonsstudier viste at oksytocininducert penile ereksjon ble mediert av uterinetype oksytocinreceptorer, kombinert med en Ca2 + -strøm inn i cellelegemene av oksytocinergiske neuroner som projiserer til ekstrahypothalamiske hjerneområder og til aktivering av nitrogenoksyd-syntase. Nitrogenoksyd i sin tur ved å fungere som en intracellulær messenger med en ukjent mekanisme (som ikke involverer guanylatcyklase) fører til aktivering av oksytocinergiske nevroner som projiserer til ryggmargen og ekstrahypothalamiske hjerneområder, inducerende penile ereksjon (figur 1) (se nedenfor og Argiolas og Melis, 1995, 2004, 2005 og referanser deri). Oksytocins evne til å aktivere sine egne neuroner
Fig. 1. (MISSING) Skjematisk fremstilling av oksytocinergiske nevroner, som stammer fra hypothalamusens paraventrikulære kjerne og prosjekterer til ekstrahypothalamiske hjerneområder, som ryggmargen, VTA, hippocampus, amygdala etc. Aktivering av disse neuronene ved dopamin, excitatoriske aminosyrer, oksytocin i seg selv, hexarelin analoge peptider og VGF-avledede peptider fører til penis ereksjon, som kan reduseres og / eller avskaffes ved stimulering av GABAergic, opioid og cannabinoid CB1 reseptorer. Aktivering av oksytocinergiske nevroner er sekundær til aktiveringen av nitrogenoksyd-syntase tilstede i disse nevronene. Faktisk endogent nitrogenoksyd dannet ved stimulering av dopamin, eksitatoriske aminosyre eller oksytocinreceptorer eller eksogent nitrogenoksyd, som det avledet fra nitrogenoksyddonorer gitt direkte inn i paraventrikulærkjernen, aktiverer oksytokinergiske neuroner ved en ennå uidentifisert mekanisme, tilsynelatende ikke relatert til stimulering av guanylat-syklase. Dette forårsaker igjen frigjøring av oksytocin i ryggmargen og i ekstrahypothalamiske hjerneområder. Noen detaljer om mekanismer som oxytocin fremkaller penile ereksjon når frigjort i disse områdene, for eksempel VTA, ventral subikulum og amygdala, er beskrevet i de respektive hjerneområdeseksjoner. Her virker oksytocin på sine egne reseptorer og øker ingen produksjon, noe som fører til penile ereksjon som funnet i PVN. I motsetning til PVN aktiverer imidlertid i caudal VTA NO guanylat-syklase. Dette medfører en økning i cGMP-konsentrasjon som fører til aktivering av mesolimbiske dopaminerge neuroner og til penis ereksjon. I VS NO aktiveres glutamatergiske nevroner som projiserer til ekstra hippocampale områder, inkludert VTA. Glutaminsyre i VTA aktiverer i sin tur mesolimbiske dopaminerge neuroner som funnet med oksytocin. Mekanismer som ligner de som er beskrevet ovenfor, vil trolig også fungere når penis ereksjon oppstår i fysiologiske sammenhenger, nemlig som når hanrotter blir plassert i nærvær av en utilgjengelig mottakelig kvinne (f.eks. Ikke-kontakt-ereksjoner) eller under kopiering.
i den paraventrikulære kjernen ble støttet av studier som viste at: (1) oksytocinreseptorer er tilstede i denne hypothalamiske kjernen (Freund-Mercier et al., 1987; Freund-Mercier og Stoeckel, 1995); (2) oksytocin fremmer sin egen frigjøring in vitro og in vivo (Freund-Mercier og Richard, 1981, 1984; Moos et al., 1984); og (3) oksytocin eksiterer sine egne nevroner ved å virke i den paraventrikulære kjernen (Yamashita et al., 1987). Dessuten er oksytocinerge synapser som påvirker cellelegemene til magnocellulære oksytocinerge nevroner også blitt identifisert i den paraventrikulære og supraoptiske kjernen i hypothalamus (Theodosis, 1985). Til slutt opphever ødeleggelse av sentrale oksytocinerge nevroner ved elektrolytiske eller kjemiske eksitotoksiske lesjoner i den paraventrikulære kjernen, som fullstendig reduserer oksytocininnholdet i sentralnervesystemet og ryggmargen, ikke bare den pro-erektile effekten av oksytocin, men svekker også medikamentindusert penisereksjon og ikke-kontaktereksjoner (se nedenfor og Argiolas et al., 1987a,b; Liu et al., 1997 og referanser deri). Resultater som ligner på de som er funnet med lesjoner i den paraventrikulære kjernen, finnes med potente og selektive oksytocinreseptorantagonister. Disse forbindelsene injisert i den paraventrikulære kjernen i nanogrammengder forhindret faktisk fullstendig oksytocinindusert penisereksjon, mens når de ble gitt i de laterale ventriklene, forhindret de ikke bare penisereksjoner indusert av oksytocin i seg selv, men også medikamentindusert penisereksjon (se avsnitt 3 nedenfor og Argiolas og Melis, 1995, 2004, 2005 og referanser deri) og ikke-kontakt ereksjoner (Melis et al., 1999a), og var dessuten ekstremt effektive i å svekke kopulatorisk atferd hos seksuelt potente hannrotter (Argiolas et al., 1988). Videre øker seksuell interaksjon FOS, genproduktet av det umiddelbare tidlige genet c-fos i paraventrikulære oksytocinerge nevroner som projiserer til ryggmargen og er involvert i kontrollen av penisereksjon (se Witt og Insel, 1994 og referanser deri). Til slutt har seksuell impotens (f.eks. manglende evne hos en voksen hannrotte til å kopulere med en østrogen-progesteronprimet reseptiv hunn) også blitt assosiert med lave nivåer av oksytocin mRNA og nitrogenoksidsyntase i den paraventrikulære kjernen i hypothalamus hos hannrotter (Benelli et al., 1995; Arletti et al., 1997) (for en omfattende gjennomgang av disse studiene, se Argiolas, 1999; Argiolas og Melis, 2004, 2005).
2.2. Det ventrale tegmentalområdet
Det ventrale tegmentale området ble nylig oppdaget som et hjerneområde hvor oksytocin induserer penisereksjon . Dette området inneholder oksytocinerge nerveender som stammer fra den paraventrikulære kjernen og oksytocinreseptorer (Freund-Mercier et al., 1987; Vaccari et al., 1998). Mer presist ble oksytocin funnet å være i stand til å indusere penisereksjon når det injiseres ensidig i kaudalområdet, men ikke i det rostrale ventrale tegmentale området på en doseavhengig måte (Melis et al., 2007). De aktive dosene var høyere enn de som kreves når det injiseres i den paraventrikulære kjernen, og lik de som induserer penisereksjon når det injiseres i det ventrale subikulumet i hippocampus eller i den posteromediale kortikale kjernen i amygdala (se nedenfor). Tilsynelatende medieres den pro-erektile effekten av aktivering av mesolimbiske dopaminerge nevroner som projiserer til skallet til nucleus accumbens, som igjen aktiverer hittil ukjente nevrale baner som projiserer til de incerto-hypothalamiske dopaminerge nevronene som støter på paraventrikulære oksytocinerge nevroner som medierer penis ereksjon (Melis et al., 2007, 2009a).
Når det gjelder mekanismen som oksytocin bruker for å aktivere dopaminerg nevrotransmisjon i det ventrale tegmentale området, tyder tilgjengelige data på at oksytocin stimulerer oksytocinerge reseptorer lokalisert i cellekroppene til mesolimbiske dopaminerge nevroner. Dette øker Ca2+-tilstrømningen inne i cellekroppene til dopaminerge nevroner, og aktiverer dermed nitrogenoksidsyntase (Succu et al., 2008). I motsetning til den paraventrikulære kjernen (se avsnitt 3 nedenfor), aktiverer nitrogenoksid i sin tur guanylatcyklase, og øker dermed konsentrasjonen av syklisk GMP. I tråd med denne mekanismen opphevet enten d(CH2)5Tyr(Me)2-Orn8-vasotocin, en potent oksytocin-antagonist, eller S-metyl-tio-l-citrullin, en potent hemmer av neuronal nitrogenoksid-syntase, injisert i det kaudale ventrale tegmentale området før oksytocin, penis ereksjon og økningen i ekstracellulær dopaminkonsentrasjon i skallet til nucleus accumbens indusert av oksytocin. Dessuten induserer 8-brom-syklisk GMP, en aktiv fosfodiesterase-resistent syklisk GMP-analog, penis ereksjon når den injiseres i det kaudale ventrale tegmentale området og øker ekstracellulær dopaminkonsentrasjon i skallet til nucleus accumbens, slik det ble funnet med oksytocin injisert i det kaudale ventrale tegmentale området (Succu et al., 2008; Melis et al., 2009a) (se også fig. 2).
Alltid i tråd med denne mekanismen reduserer haloperidol, en potent dopamin D2-reseptorantagonist, injisert i skallet til nucleus accumbens, penis ereksjon indusert av oksytocin injisert i det ventrale tegmentale området (Melis et al., 2007). Ovennevnte mekanisme støttes også av doble immunofluorescensstudier, som viser at oksytocinfibre treffer cellekroppene til dopaminerge nevroner i det kaudale ventrale tegmentale området, som tidligere var merket med den retrograde sporstoffet Fluorogold injisert i skallet til nucleus accumbens (Melis et al., 2007; Succu et al., 2008). Aktiveringen av disse dopaminerge nevronene og dopaminreseptorene i nucleus accumbens fører igjen til aktivering av nevrale baner som ennå ikke er identifisert, og som stimulerer incerto-hypothalamiske dopaminerge nevroner til å frigjøre dopamin i den paraventrikulære kjernen, og dermed aktiverer oksytocinerge nevroner som projiserer til ryggmargen og medierer penisereksjon (se ovenfor og Melis et al., 2007; Succu et al., 2007, 2008). Faktisk økte oksytocin injisert i det kaudale ventrale tegmentale området i en dose som induserte penisereksjon, den ekstracellulære dopaminkonsentrasjonen i dialysatet som ble oppnådd ikke bare fra nucleus accumbens, men også fra den paraventrikulære kjernen (Succu et al., 2007).
2.3. Hippocampus
CA1-feltet i hippocampus var det andre hjerneområdet som var rikt på oksytocinerge fibre og reseptorer, identifisert i tidligere studier der injeksjon av oksytocin induserte penisereksjon (se Bujis, 1978; Sofroniew, 1983). I motsetning til den paraventrikulære kjernen ble det imidlertid funnet at oksytocin her kun var i stand til å indusere penisereksjon når det ble injisert bilateralt og i høyere doser enn de som ble funnet aktive i den paraventrikulære kjernen (Melis et al., 1986; Chen et al., 1992). Injeksjoner av oksytocin i subikulum ble funnet inaktive i disse tidligere studiene. Nyere og mer nøye mikroinjeksjonsstudier har imidlertid ført til identifiseringen av et område i det ventrale subikulum der injeksjon av oksytocin var i stand til å indusere penisereksjon på en doseavhengig måte (Melis et al., 2009b). Den pro-erektile effekten av oksytocin injisert i dette hjerneområdet ble observert i doser som ligner på de som ble funnet aktive i det ventrale tegmentale området etter ensidig injeksjon (Melis et al., 2007), slik det ble funnet i den paraventrikulære kjernen. Tilsynelatende induserer oksytocin injisert i det ventrale subikulum penile ereksjon ved å aktivere oksytocinerge reseptorer i nevroner som inneholder nitrogenoksidsyntase, noe som forårsaker en økning i nitrogenoksidproduksjon. Nitrogenoksid, som igjen fungerer som en intercellulær budbringer, aktiverer glutaminsyrenevrotransmisjon, noe som fører til penile ereksjon, muligens gjennom nevrale (glutamaterge) efferente projeksjoner fra det ventrale subikulum til ekstra-hippocampale hjerneområder som modulerer aktiviteten til mesolimbiske dopaminerge nevroner (f.eks. det ventrale tegmentale området, den prefrontale cortex, den paraventrikulære kjernen) (se nedenfor og Melis, 2007, 2009b; Succu et al., 2008).
Denne virkemekanismen støttes av intra-cerebrale mikrodialyseforsøk, som viser at oksytocin injiseres i ventral subikulum ved doser som induserer penile ereksjon, øker produksjon av nitrogenoksid og ekstracellulær glutaminsyrekonsentrasjon i dialysatet fra ventral subikulum (Melis et al. , 2010) og ekstracellulær dopamin i nucleus accumbens (Melis et al., 2007). Disse responsene ble antagonisert ikke bare av oksytocinreceptorantagonisten d (CH2) 5Tyr (Me) 2-Orn8-vasotocin, men også av nevron-nitrogenoksyd-syntaseinhibitoren S-metyl-tio-lcitrullin og ved hjelp av nitrogentoksydavhengige hemoglobin gitt inn i det ventrale subikulumet få minutter før oksytocin (Melis et al., 2010).
I tråd med denne virkningsmekanismen induserer aktivering av glutamaterg nevrotransmisjon ved NMDA injisert i det ventrale subikulum dessuten ereksjon av penis (Melis et al., 2010). Fenotypen til efferente projeksjoner fra det ventrale subikulum, som forårsaker aktivering av mesolimbiske dopaminerge nevroner og økning av ekstracellulær dopamin i nucleus accumbens, er for tiden ukjent. Siden penis ereksjon indusert av oksytocin injisert i det ventrale subikulum skjer samtidig med en økning av ekstracellulær glutaminsyre i dialysatet fra det ventrale tegmentale området, men ikke fra nucleus accumbens, og antagoniseres av (+)MK-801, en potent ikke-konkurrerende antagonist av eksitatoriske aminosyrereseptorer av NMDA-subtypen (Woodruff et al., 1987), injisert i det ventrale tegmentale området, men ikke i nucleus accumbens (se fig. 2 og Melis et al., 2009b), er det sannsynlig at disse projeksjonene fører til aktivering av glutamaterg nevrotransmisjon i det ventrale tegmentale området, som igjen aktiverer mesolimbiske dopaminerge nevroner som projiserer til nucleus accumbens. Hvorvidt den økte konsentrasjonen av glutaminsyre som finnes i det ventrale tegmentale området etter oksytocininjeksjon i det ventrale subikulum frigjøres fra nevroner som stammer fra subikulum eller fra andre hjerneområder (f.eks. prefrontal cortex), er ukjent for øyeblikket. Ikke desto mindre forårsaker dette aktivering av mesolimbiske dopaminerge nevroner og økt frigjøring av dopamin i nucleus accumbens . Her fører aktivering av dopaminreseptorer til aktivering av incerto-hypothalamiske dopaminerge nevroner, som frigjør dopamin i den paraventrikulære kjernen, og dermed aktiverer oksytocinerge nevroner som projiserer til ryggmargen og medierer penisereksjon (se ovenfor og Melis et al., 2007, 2009a; Succu et al., 2008).
2.4. Amygdalaen
Amygdala er et annet hjerneområde rik på oksytocinfibre og reseptorer (se Freund-Mercier et al., 1987; Vaccari et al., 1998; Uhl-Bronner et al., 2005). Oksytokin her antas å være involvert i ulike funksjoner, fra anxiolyse, sosialt minne og kognisjon, sosialt forsterket læring, emosjonell empati, følelsesmessig ansiktsbehandling og frykt hos mennesker for erektil funksjon og seksuell oppførsel (se Kondo et al., 1998; Dominguez et 2001; Ebner et al., 2005; Huber et al., 2005; Domes et al., 2007; Petrovic et al., 2008; Lee et al., 2009; Donaldson and Young; 2009; Hurlemann et al. , 2010). Imidlertid ble evnen til oksytocin til å indusere penile ereksjon hos hannrotter når det ble indusert i amygdala-postkirtikalkjernen, nylig oppdaget (Melis et al., 2009b). Dette reaksjonen oppstod samtidig med en økning i ekstracellulær dopamin-konsentrasjon i dialysatet oppnådd fra skallet av nukleotilførselen, som funnet etter oksytocininjeksjon i det ventrale subikulum (Melis et al., 2009b). Mekanismen ved hvilken oksytocin injisert i amygdalas posteromediale kortikale kjerne inducerer penile ereksjon er ukjent for øyeblikket. Tilgjengelige data viser at både penile ereksjon og økningen i ekstracellulær dopamin-konsentrasjon i dialysatet oppnådd fra nucleus accumbens medieres ved aktivering av oksytocinergreceptorer, da begge responsene ble avskaffet av oksytocinreceptorantagonisten d (CH2) 5Tyr ( Me) 2-Orn8-vasotocin injisert i amygdala-kjernen få minutter før oksytocin (Melis et al., 2009b).
Uansett hvilken mekanisme oksytocin aktiverer i den posteromediale kortikale kjernen i amygdala, oppheves den seksuelle responsen indusert av peptidet ved blokkering av alle dopaminerge reseptorer med cis-flupentiksol injisert i skallet til nucleus accumbens og ved blokkering av NMDA-reseptorer med (+)MK-801 injisert i det ventrale tegmentale området, men ikke i nucleus accumbens, slik det er funnet for penisereksjon indusert av oksytocin injisert i det ventrale subikulum (Melis et al., 2009b). Dette antyder at oksytocin injisert i den posteromediale kjernen i amygdala aktiverer glutaminsyre-nevrotransmisjon i det ventrale tegmentale området. Dette forårsaker igjen aktivering av mesolimbiske dopaminerge nevroner, noe som fører til penisereksjon. I lys av studier som viser nevrale baner som forbinder denne kjernen i amygdala med det ventrale subikulum (Canteras et al., 1995; French og Totterdell, 2003), øker disse funnene muligheten for at det kan eksistere en interaksjon mellom disse to hjerneområdene, selv om direkte baner fra amygdala enten til nucleus accumbens eller til det ventrale tegmentale området har blitt beskrevet (Kelley og Domesick, 1982; Witter, 2006).
2.5. Ryggmargen
Ryggmargen er et annet område i sentralnervesystemet som inneholder oksytocinergiske fibre og reseptorer (Freund-Mercier et al., 1987, Uhl-Bronner et al., 2005), hvor oksytocin fremkaller penile ereksjon (Tang et al., 1998 ; Veronneau-Longueville et al., 1999; Giuliano og Rampin, 2000; Giuliano et al., 2001). Som nevnt ovenfor, kommer disse oksytocinergiske fibre opp i hypothalamusens paraventrikulære kjerne og bidrar til nedadgående veier som styrer spinal autonome neuroner som mediserer penile ereksjon. Faktisk gjør disse fibrene synaptiske kontakter i dorsal horn preganglioniske sympatiske og parasympatiske celle kolonner i thoraco-lumbale og lumbo-sacral kanal med spinal nevroner innervating penile cavernous corpora (Marson og McKenna, 1996; Giuliano og Rampin, 2000; Giuliano et al. , 2001). Disse synaptiske kontaktene ble demonstrert ved merking av spinalneuroner med opprinnelse i penis og å nå ryggmargen med spesifikke retrograde sporstoffer injisert i cavernous corpora, kombinert med dobbelt immuno-fluorescens og konfokal lasermikroskopi studier (Tang et al., 1998; Veronneau-Longueville et al., 1999). I tråd med disse studiene øker intravaskeløs trykk i bedøvelsesmåte ved bedøvelse av mannlige rotter ved intratekal injeksjon av kumulative doser av oksytocin ved lumbo-sakral, men ikke ved thoraco-lumbal nivå. Disse effektene ble avskaffet ved blokkering av oksytocinergreceptor med d (CH2) 5Tyr (Me) 2-Orn8-vasotocin og av seksjon av bekkenetene (Giuliano og Rampin, 2000; Giuliano et al., 2001). Disse resultatene viser at oksytocin, som virker ved lumbo-sakral ryggmargen, øker intracavernøstrykket, og foreslår at oksytocin, frigjort under fysiologisk aktivering av den paraventrikulære kjernen, er en potent aktivator av spinal pro-erektile nevroner som projiserer til det kvernøse corpora. Interessant nok er disse pro-erektile spinalnervene på hvilke oksytocin virker for å utøve sin pro-erektile effekt, også mottatt synaptiske kontakter fra serotoninergiske nevroner med opprinnelse i kjernen paragigantocellularis av retikulær dannelse av medulla oblongata (Marson og McKenna, 1992; Tang et al. ., 1998). Destruksjon av disse serotoninergiske nevronene letter utløsning og penisreflekser hos hannrotter (Marson og McKenna, 1992; Yells et al., 1992). Siden medikamenter som stimulerer 5HT2C-reseptorer, letter penis ereksjon når de gis intracerebroventricularly, men ikke inn i paraventrikulær kjernen, og legemidler som blokkerer 5HT2C-reseptorer, reduserer også dopaminagonist og oksytocininducert penile ereksjon, mens dopaminantagonister ikke reduserer 5HT2C-agonistinducert penile ereksjon ( se Stancampiano et al., 1994 og referanser deri), har det også blitt foreslått at oksytocin letter virkningen av pro-erektile 5HT2C-reseptorer i nivået av den lumbo-sakrale ryggmargen (Stancampiano et al., 1994). Alternativt kan oksytocin påvirke aktiviteten til spinal-nedadgående serotoninergiske nevroner ved å virke direkte i kjernen paragigantocellularis, hvor disse nevronene stammer (se Stancampiano et al., 1994). I tråd med denne muligheten er det beskrevet en oksytocinerg bane som starter i den paraventrikulære kjernen og når nucleus paragigantocellularis i den retikulære formasjonen i medulla oblongata (Bancila et al., 2002), og aktivering av 5HT2C-reseptorer lokalisert i ryggmargen nedstrøms dopamin- og oksytocinreseptorer anses som en vanlig mekanisme for den pro-erektile effekten av disse forbindelsene og til og med av ACTH-MSH-peptider (Kimura et al., 2008).
3. Interaksjoner mellom oksytocin, dopamin og glutaminsyre i sentralnervesystemet og penis ereksjon
Som nevnt i avsnitt 1, har alle oksytocinerge nevroner som finnes i sentralnervesystemet sitt opphav i den paraventrikulære kjernen og omkringliggende strukturer. Aktiviteten til disse nevronene er under kontroll av forskjellige nevrotransmittere og/eller nevropeptider. Blant de mest studerte på paraventrikulært nivå er dopamin, glutaminsyre, gamma-aminosmørsyre (GABA), nitrogenoksid, endokannabinoider, opioidpeptider, veksthormonfrigjørende peptider, VGF-relaterte peptider og oksytocin i seg selv. Dopamin, glutaminsyre, veksthormonfrigivende peptider, VGF-avledede peptider og oksytocin er stimulerende. F.eks. letter disse forbindelsene og deres agonister penisereksjon når de injiseres i den paraventrikulære kjernen, mens GABA, opioidpeptider og endokannabinoider er hemmende. F.eks. hemmer disse forbindelsene eller deres agonister penisereksjon (se Meisel og Sachs, 1994; Witt og Insel, 1994; Argiolas og Melis, 1995, 2004, 2005; Giuliano og Rampin, 2000, 2004; McKenna, 2000; Andersson, 2001; Hull et al., 2002).
Flere linjer med eksperimentelt bevis tyder på at disse oksytocinergiske nevronene og de nevnte nevrotransmittere og nevropeptider er involvert i kontroll av erektil funksjon og seksuell oppførsel i forskjellige fysiologiske sammenhenger. Videre kan oxytocin frigjort i ekstrahypothalamiske hjerneområder, som det ventrale tegmentale området, hippocampus og dets regioner, amygdala og ryggmargen påvirke aktiviteten til de nevronene som oxytocinergiske synapser påvirker. For øyeblikket er de eneste neuronene som er viktige for penis ereksjon, som oxytocinergiske synapser innvirker på, identifisert med sikkerhet, celllegemene til mesolimbiske dopaminerge nevroner i det kaudale ventrale tegmentale området som projiserer til skallet til nukleinsystemet (Melis et al., 2007 Succu et al., 2008), og de pro-erektile spinalneurene som projiserer fra lumbo-sakralkanalen til kavernøs korpora (se Giuliano og Rampin, 2000, Giuliano et al., 2001) (se også seksjoner 2.2 og 2.5) . Selv om oksytokinergiske synapser og reseptorer også er identifisert i ventral subikulum, er amygdala og ryggmargen, områder som er viktige for penis ereksjon (se ovenfor), i disse områdene typen av nevrotransmitter / s tilstede i nevronene på hvilke oksytocinergiske nerveendringer påvirker, er fortsatt ukjente.
Denne delen av oversikten oppsummerer kort den nyere litteraturen om mekanismene som ligger til grunn for den pro-erektile effekten av oksytocin injisert i det caudale ventrale tegmentale området, det ventrale subikulumet i hippocampus og i ryggmargen. Spesiell oppmerksomhet rettes mot peptidets interaksjon med dopamin og glutaminsyre i disse områdene, og hvilken rolle denne interaksjonen kan spille i den sentrale kontrollen av erektil funksjon. En kort oppsummering av effektene av dopamin og glutaminsyre på oksytocinerge nevroner i den paraventrikulære kjernen, som også spiller en nøkkelrolle i erektil funksjon, gis først, for å gjøre leseren oppmerksom på den tidlige forskningsstatusen på dette feltet, ettersom disse studiene allerede har blitt grundig gjennomgått (se Argiolas og Melis, 1995, 2004, 2005; Melis og Argiolas, 2003). Også i dette tilfellet gis det spesiell oppmerksomhet til de nyeste resultatene, som antyder en viktig rolle for både en dopamin-oksytocin-kobling og en glutaminsyre-oksytocin-kobling, ikke bare i seksuell ytelse (ereksjon og kopulasjon), men også i seksuell opphisselse og seksuell motivasjon.
3.1. Dopamin-oksytocin-interaksjon i den paraventrikulære kjernen
Dopaminagonisters evne til å indusere penisereksjon ved å aktivere sentrale oksytocinerge nevroner ble foreslått umiddelbart etter oppdagelsen av at apomorfin induserer penisereksjon når det injiseres i den paraventrikulære kjernen (Melis et al., 1987) da oksytocinreseptorantagonisten d(CH2)5Tyr(Me)2-Orn8-vasotocin injisert intracerebroventrikulært (ICV) ble funnet å kunne redusere nesten fullstendig penisereksjon indusert ikke bare av oksytocin gitt ICV, men også av apomorfin gitt subkutant (Argiolas et al., 1987b). Disse resultatene ble etterfulgt av resultater fra andre studier som viste lignende resultater når d(CH2)5Tyr(Me)2-Orn8-vasotocin ble gitt icv og apomorfin ble gitt direkte i den paraventrikulære kjernen (Melis et al., 1989b), noe som tyder på at dopaminagonister induserer ereksjon ved å aktivere paraventrikulære oksytocinerge nevroner som projiserer til ekstrahypothalamiske hjerneområder og spesielt til ryggmargen (se Argiolas og Melis, 1995, 2004, 2005). I tråd med denne hypotesen har man nylig funnet at blokade av lumbosakrale oksytocinerge reseptorer av en ikke-peptidisk oksytocinreseptorantagonist hos bedøvede rotter er i stand til å oppheve apomorfininduserte økninger i intrakavernøs trykk indusert av dopaminagonisten apomorfin, noe som gir bevis for en paraventrikulo-spinal oksytocinerg bane involvert i penis ereksjon (Baskerville et al., 2009).
Studier som hadde som mål å identifisere dopaminreseptoren som er ansvarlig for induksjon av penisereksjon, viste at dopaminreseptoragonister også i den paraventrikulære kjernen induserer penisereksjon ved å virke på dopaminreseptorer i D2-familien , slik det er funnet med dopaminreseptoragonister gitt systemisk (se Melis et al., 1987; Eaton et al., 1991; Melis og Argiolas, 1995a). Følgelig ble apomorfin, en potent blandet D1/D2-reseptoragonist, og kinpirol, en potent selektiv D2-reseptoragonist, men ikke SKF 38393, en selektiv D1-reseptoragonist, injisert i denne hypothalamiske kjernen, funnet i stand til å indusere penisereksjon på en doseavhengig måte, og den seksuelle responsen indusert av disse D2-reseptoragonistene ble opphevet av D2-reseptorantagonister, som haloperidol og l-sulpirid, men ikke av SCH 23390, en selektiv D1-reseptorantagonist (Melis et al., 1987). Apomorfins evne til å indusere ereksjon av penis når det injiseres i den paraventrikulære kjernen ble også bekreftet av telemetristudier som viser at dopaminagonisten gitt i den paraventrikulære kjernen er i stand til å øke det intrakavernøse trykket hos våkne hannrotter uten å endre systemisk blodtrykk (Chen et al., 1999; Giuliano og Allard, 2001), slik det ble funnet etter systemisk injeksjon (Bernabè et al., 1999). Disse studiene bekreftet også en hovedrolle for D2-reseptorer, ettersom D1-reseptoragonister vanligvis ikke var i stand til å øke det intrakavernøse trykket når de injiseres i den paraventrikulære kjernen (Chen et al., 1999).
Flere eksperimentelle bevislinjer var da tilgjengelige som tydet på at paraventrikulære D2-reseptorer, hvis stimulering induserer penisereksjon, er lokalisert på cellekroppene til oksytocinerge nevroner. For det første inneholder den paraventrikulære kjernen dopaminerge nerveterminaler som tilhører de såkalte incertohypothalamiske dopaminerge nevronene. Cellekroppene til disse nevronene er plassert i A13- og A14-gruppen til Dahlstrom og Fuxe (1964), arboriserer i stor grad og innerverer flere hypothalamiske strukturer, inkludert paraventrikulære oksytocinerge nevroner som projiserer til nevrohypofysen og/eller til ekstrahypothalamiske hjerneområder (Buijs et al., 1984; Lindvall et al., 1984).
Innblanding av disse dopaminerge nevronene ved paraventrikulær nivå i kontrollen av penile ereksjon og kopiering støttes ved mikrodialysestudier som viser at konsentrasjonene av ekstracellulær dopamin og 3,4-dihydroksyfenyleddiksyre (DOPAC), dets hovedmetabolitt, økes i dialysatet oppnådd fra Den paraventrikulære kjernen av seksuelt potente mannlige rotter viser ikke-kontakt-ereksjoner når de legges i nærvær av en utilgjengelig ovariektomert østrogen + progesteron-primet-mottakelig kvinne (Melis et al., 2003).
Økningen i dopamin- og DOPAC-konsentrasjoner var enda høyere når kopulasjon med den reseptive hunnen var tillatt (Melis et al., 2003), som funnet i det mediale preoptiske området (Hull et al., 1995) og i nucleus accumbens (Pfaus og Everitt, 1995). For det andre viser flere studier at penisereksjon indusert av stimulering av paraventrikulære D2-reseptorer, medieres av oksytocin frigjort i disse områdene. Følgelig ble apomorfin gitt i doser som induserer penisereksjon, funnet i stand til å øke oksytocinkonsentrasjonen, ikke bare i plasma hos rotter og aper (Melis et al., 1989a; Cameron et al., 1992), men også i ekstra-hypothalamiske hjerneområder, som hippocampus (Melis et al., 1990). I tråd med disse resultatene ble det nylig vist at apomorfin injisert i den paraventrikulære kjernen i en dose som induserer ereksjon også kan øke ekstracellulær dopaminkonsentrasjon i nucleus accumbens, en effekt redusert av oksytocinreseptorantagonisten d(CH2)5Tyr(Me)2-Orn8-vasotocin injisert i det ventrale tegmentale området (Succu et al., 2007; Melis et al., 2009a) (se også avsnitt 4). For det tredje, bilaterale elektrolytiske lesjoner i den paraventrikulære kjernen, som nesten fullstendig eliminerer oksytocin fra ekstrahypothalamiske hjerneområder (Hawthorn et al., 1985), opphever apomorfinindusert penisereksjon (Argiolas et al., 1987a), og selektive oksytocinreseptorantagonister gitt i de laterale ventriklene, men ikke i den paraventrikulære kjernen, reduserer doseavhengig apomorfinindusert penisereksjon med en potens parallelt med disse forbindelsenes i blokkering av oksytocinreseptorer (Melis et al., 1989b). Oksytocinreseptorantagonister er også ekstremt potente i å redusere tilretteleggingen av mannlig seksuell atferd indusert ikke bare av oksytocin, men også av apomorfin (Argiolas et al., 1988, 1989).
Når det gjelder mekanismen der D2-reseptorer aktivert av dopamin eller dopaminreseptoragonister øker aktiviteten til oksytocinerge nevroner, og dermed frigjør oksytocin i ekstrahypothalamiske hjerneområder og i ryggmargen, støtter en rekke eksperimentelle data hypotesen om at stimulering av D2-reseptorer øker konsentrasjonen av intracellulære Ca2+-ioner inne i cellekroppene til oksytocinerge nevroner, noe som fører til aktivering av nitrogenoksidsyntase, et Ca2+-kalmodulinavhengig enzym, som er tilstede i disse cellekroppene (Vincent og Kimura, 1992; Torres et al., 1993; Sanchez et al., 1994; Sato-Suzuki et al., 1998). Den økte nitrogenoksidproduksjonen forårsaker igjen aktivering av oksytocinerge nevroner. Følgelig ble (1) apomorfinindusert penisereksjon forhindret av organiske kalsiumkanalblokkere og av _-konotoksin GVIA, en potent og selektiv blokker av spenningsavhengige Ca2+-kanaler av N-typen (McCleskey et al., 1987), gitt i den paraventrikulære kjernen (se Argiolas et al., 1990, og referanser deri); (2) apomorfinindusert penisereksjon ble forhindret av nitrogenoksidsyntasehemmere gitt i den paraventrikulære kjernen (Melis et al., 1994c); og (3) apomorfin og andre D2-reseptoragonister gitt i doser som induserer penisereksjon økte nitrogenoksidproduksjonen i det paraventrikulære dialysatet oppnådd ved intracerebral mikrodialyse, en økning som ble redusert av hemmere av paraventrikulær nitrogenoksidsyntase gitt i doser som reduserer D2-reseptoragonistindusert penisereksjon (Melis et al., 1996). Mekanismen som nitrogenoksid bruker for å aktivere paraventrikulære oksytocinerge nevroner er fortsatt ukjent, selv om tilgjengelige data tyder på at nitrogenoksid fungerer som en intracellulær budbringer og at guanylatcyklase ikke er involvert. Faktisk ble det funnet at den aktive fosfodiesteraseresistente analogen av syklisk GMP, 8-brom-syklisk GMP, ikke kunne indusere ereksjon når den ble gitt i den paraventrikulære kjernen (fig. 2) (se Melis og Argiolas, 1995b og referanser deri).
Tolkningen ovenfor har ofte blitt ansett som lite overbevisende, hovedsakelig fordi stimuleringen av dopamin D2-reseptorer vanligvis er koblet til inhibering snarere enn eksitasjon av cellekroppene til nevronene som inneholder disse reseptorene gjennom forskjellige G-proteinkoblede mekanismer (se Sokoloff og Schwartz, 1995). Imidlertid har en mulig forklaring på dette avviket, som er i tråd med en direkte stimulering av paraventrikulære oksytocinerge nevroner av dopamin, nylig blitt foreslått ved oppdagelsen av en G-proteinkoblet dopamin D4- reseptor, et medlem av D2-reseptorfamilien (D2, D3 og D4), hvis stimulering øker Ca2+-tilstrømningen i cellepreparater som inneholder en klonet versjon av denne reseptorsubtypen (Moreland et al., 2004). Enda viktigere er det at en selektiv D4-reseptoragonist (f.eks. ABT 724) (N-metyl-4-(2-cyanofenyl)piperazynil-3-metylbenzamidmaleat) ble funnet å være i stand til å indusere penis ereksjon hos hannrotter når den gis systemisk (Brioni et al., 2004). Denne effekten ble ikke funnet med den selektive D2-reseptorsubtypeagonisten PNU-95666E (R-5,6-dihydro-N,N-dimetyl-4Himidazo[4,5,1-i]kinolin-5-amin) (Hsieh et al., 2004), som heller ikke var i stand til å øke Ca2+-tilstrømningen i cellepreparatene som inneholdt den klonede versjonen av D4-reseptorsubtypen (Brioni et al., 2004; Moreland et al., 2004). I tråd med hypotesen og funnene ovenfor ble det funnet at PD 168,077 (N-metyl-4-(2-cyanofenyl)piperazynil-3-metylbenzamidmaleat), PIP-3EA (2-[4-(2-metoksyfenyl)piperazin-1-ylmetyl]imidazo[1,2-a]pyridin) og andre selektive D4-reseptoragonister (Heier et al., 1997; Melis et al., 2006b; Löber et al., 2009) kunne indusere ereksjon når de injiseres systemisk, icv og i den paraventrikulære kjernen, men mindre effektivt enn apomorfin. Den pro-erektile effekten av disse D4-reseptoragonistene ble forhindret av L-745,870 (3-(4-[klorfenyl]piperazin-1-yl)-metyl-1H-pyrrolo[2,3-B]pyridintrihydroklorid), en selektiv D4-reseptorantagonist (Patel et al., 1997; Melis et al., 2005, 2006b; Löber et al., 2009).
Endelig ble den pro-erektile effekten av de ovenfor nevnte D4-reseptoragonister også redusert med nitrogenoksyd-syntasehemmere gitt i paraventrikulær kjernen og ved d (CH2) 5Tyr (Me) 2-Orn8-vasotocin, en selektiv oksytocinreceptorantagonist gitt icv, men ikke i paraventrikulær kjernen. Disse resultatene er i tråd med hypotesen om at D4-reseptoragonister også stimulerer oksytokinergiske neuroner ved å aktivere nitrogenoksid-syntase og frigjøre oksytocin i ekstrahypothalamiske hjerneområder, noe som igjen letter penile ereksjon, som vist for apomorfin og klassiske D2-agonister (Melis et al. ., 2005, 2006b; Löber et al., 2009).
Funnene ovenfor støtter også hypotesen om at dopamin induserer ereksjon ved å virke på D4-reseptorer lokalisert på cellekroppene til paraventrikulære oksytocinerge nevroner, og som forårsaker økt Ca2+-tilstrømning inn i cellekroppene til oksytocinerge nevroner, noe som fører til økt nitrogenoksidproduksjon. Nitrogenoksid aktiverer igjen oksytocinerge nevroner til å frigjøre oksytocin i ekstrahypothalamiske hjerneområder og i ryggmargen, som allerede diskutert. I denne forbindelse er det verdt å merke seg at dopaminreseptorer har blitt identifisert i cellekroppene til oksytocinerge nevroner i den paraventrikulære kjernen først nylig ved doble immunofluorescensstudier med høyselektive D2-, D3- og D4-reseptorantistoffer og med oksytocinantistoffer. Disse studiene har vist uttrykk av alle tre D2-reseptorsubtypene (D2, D3 og D4), som kolokaliserte separat i cellekroppene til oksytocinerge nevroner i den paraventrikulære kjernen (og også i den supraoptiske kjernen og det mediale preoptiske området) (Baskerville og Douglas, 2008; Baskerville et al., 2009).
Dette gir sterk nevroanatomisk støtte til muligheten for at dopamin og dopaminreseptoragonister av D2-typen induserer ereksjon ved å aktivere oksytocinerge nevroner direkte som projiserer til de ekstrahypothalamiske hjerneområdene som er nevnt ovenfor , f.eks. ryggmargen, det ventrale tegmentale området, hippocampus og amygdala. Disse funnene gir imidlertid ingen hjelp til å identifisere D2-reseptorsubtypen(e), hvis stimulering forårsaker den erektile responsen. Dessverre kan ingen hjelp hentes selv fra studier som tar sikte på å identifisere oksytocinerge nevroner aktivert av dopaminreseptoragonister i den paraventrikulære kjernen. Til tross for den ulik aktiviteten på de ulike dopaminreseptor-subtypene, forårsaker enten blandede dopaminreseptoragonister (f.eks. apomorfin), selektive D2-reseptoragonister (f.eks. kinpirol, som virker på alle D2-reseptor-subtyper) eller selektive D4-reseptoragonister aktivering av oksytocinerge nevroner, målt ved økningen av FOS-protein i parvocellulære oksytocinerge nevroner i den paraventrikulære kjernen (Bitner et al., 2006). Dette funnet har imidlertid nylig blitt stilt spørsmål ved, ettersom økningen i FOS-protein i paraventrikulære oksytocinerge nevroner bare ble funnet når penis ereksjon ble indusert av kinerolan, som hovedsakelig virker på D2- og D3-reseptor-subtyper, men ikke av PD 168077, en D4-reseptoragonist, til tross for begge forbindelsenes evne til å indusere seksuell respons (Baskerville et al., 2009).
Ytterligere eksperimenter med selektive agonister av de andre D2-reseptorsubtypene (hovedsakelig D2 og D3) er da nødvendige for å identifisere den nøyaktige rollen til hver dopaminreseptor-subtype i kontrollen av erektilfunksjonen på paraventrikulært nivå. I dette henseende er apomorfin, som virker kraftig på alle dopaminreseptor-subtyper (se Brioni et al., 2004, og referanser deri), mye mer effektivt enn D4-reseptoragonister ved induksjon av penile ereksjon når de injiseres i paraventrikulær cellekjernen. Dette kan forklares av en høyere affinitet av apomorfin på D4-reseptorer sammenlignet med den av de testede D4-reseptoragonister, eller alternativt kan D4-reseptoragonister virke som D4-reseptor-partielle agonister, eller samtidig samtidig aktivering av forskjellige dopaminreseptor-subtyper av apomorfin produsere en høyere aktivering av oksytocinergiske nevroner medierende penile ereksjon, enn aktiveringen av D2 reseptoragonister av D4-reseptorsubtypen.
Interaksjoner mellom dopamin D1- og D2-reseptorer er allerede beskrevet i kontrollen av seksuell atferd på nivået av det mediale preoptiske området (se Hull et al., 1989). Dersom manglende evne til selektive D2-reseptoragonister til å indusere penis ereksjon (Hsieh et al., 2004) vil bli bekreftet (men se Depoortère et al., 2009), for eksempel også etter injeksjon av disse forbindelsene i den paraventrikulære kjernen, bør en viktig rolle for D3-reseptorer alene eller sammen med D4-reseptorer i aktiveringen av oksytocinerge nevroner som medierer penis ereksjon analyseres i detalj (se Baskerville et al., 2009). Dessverre er selektive D2- og D3-reseptoragonister (f.eks. som har forskjellig affinitet for disse to reseptorsubtypene med minst fire/fem størrelsesordener in vitro) ikke tilgjengelige for øyeblikket. Av denne grunn må det nylige antydningen om at D3-reseptorer medierer penisereksjon indusert av klassiske D2-reseptoragonister, som hovedsakelig er basert på evnen til antatte D3-reseptorantagonister karakterisert i in vitro-eksperimenter, til å redusere penisereksjon indusert av klassiske D2-agonister, som apomorfin, kinpirol og pramipexol, som potent aktiverer alle dopamin D2-reseptorsubtyper (Collins et al., 2009), absolutt valideres med andre eksperimenter. Denne valideringen er også nødvendig fordi det ikke ble funnet noen effekt av D4-reseptoragonister på penisereksjon i denne studien, i slående kontrast til resultatene fra studiene sitert ovenfor, som viser en pro-erektil effekt av D4-reseptoragonister. Selv apomorfins evne til å indusere penisereksjon (og gjesping) hos D4-reseptor-knockout-mus med en potens identisk med den som er sett hos villtype D4-reseptor-knockout-mus og D3-reseptor-antagonisters evne til å oppheve apomorfinresponsen hos disse dyrene (Collins et al., 2009) kan ikke betraktes som et definitivt bevis for en selektiv rolle for D3-reseptor-subtypen i D2-reseptoragonist-indusert penisereksjon. Bortsett fra artsforskjeller har studier med nevrotransmitter-/nevropeptid- og/eller nevrotransmitter-/nevropeptidreseptor-genablasjon (nevrotransmitter-/nevropeptid- og/eller nevrotransmitter-/nevropeptidreseptor-knockout-dyr) vanligvis bidratt til ytterligere forvirring og komplikasjoner i bekreftelsen av den antatte seksuelle rollen til nevrotransmittere og/eller nevropeptider og deres reseptorer. Nemlig produserer oksytocin-genablasjon oksytocin-knockout-mus som parer seg og kopulerer normalt, som om oksytocin var unødvendig for paring og kopulering. Også de homozygote hunnmusene med oksytocin-knockout viser normal paring og fødsel, men med en markant svekkelse av melkeproduksjonen (Nishimori et al., 1996; Young et al., 1996). Ablasjonen av genet som koder for neuronal nitrogenoksidsyntase produserer også nitrogenoksidsyntase-knockout-mus som parer seg og kopulerer normalt (Huang et al., 1993). Dette skjer til tross for at nitrogenoksidsyntase produserer nitrogenoksid, som er en av de viktigste fysiologiske mediatorene for penisereksjon på penisnivå (Burnett et al., 1992; Rajfer et al., 1992) og på sentralt nivå, i den paraventrikulære kjernen i hypothalamus (Argiolas, 1994; Benelli et al., 1995; Melis et al., 1998). Imidlertid indikerer disse funnene sannsynligvis et viktig trekk ved reproduksjonsfysiologi, dvs. redundansen til systemene som er involvert i kontrollen på sentralt og perifert nivå.
Slik redundans har utvilsomt en evolusjonær opprinnelse, siden den garanterer overføring av gener til neste generasjon for artens overlevelse. Derfor tyder det faktum at ablasjon av D4-reseptorgenet ikke endrer den pro-erektile effekten av apomorfin på at D4-reseptorer, som oksytocin og nitrogenoksid, bare er noen få av mediatorene som virker i systemene som kontrollerer erektil funksjon, snarere enn å antyde at det ikke er noen rolle for disse reseptorene i kontrollen av penis ereksjon og seksuell atferd. At D4-agonister ikke klarer å indusere penis ereksjon når de gis systemisk til hannrotter av forskjellige stammer, har nylig blitt rapportert i en annen studie (Depoortère et al., 2009). I motsetning til arbeidet til Collins et al. (2009), og for å gjøre bildet av rollen til de forskjellige D2-reseptorsubtypene i kontrollen av penisereksjon enda mer forvirrende, viser denne studien også at antatte selektive D3-reseptorantagonister gitt systemisk ikke var i stand til å redusere apomorfinindusert penisereksjon hos hannrotter av stammen som er mer følsom for den pro-erektile effekten av apomorfin, mens den seksuelle responsen (og gjespingen) ble motvirket av den selektive D2-antagonisten L-741,626 (3-[[4-(4-klorfenyl)-4-hydroksypiperidin-1-yl]metyl-1H-indol), noe som får forfatterne til å antyde at det er D2-reseptorer, snarere enn D3- og D4-reseptorer, som spiller en viktig rolle i D2-agonistindusert penisereksjon (Depoortère et al., 2009). Til slutt kan ikke muligheten for at den eksitatoriske effekten av dopaminreseptoragonister på oksytocinerge nevroner som medierer penisereksjon, i det minste delvis, er indirekte snarere enn direkte, f.eks. mediert eller påvirket av endringer i aktiviteten til andre nevrotransmittere nevropeptider som er i stand til å modulere aktiviteten til oksytocinerge nevroner i den paraventrikulære kjernen, utelukkes fullstendig.
3.2. Glutaminsyre-oksytocin-interaksjon i den paraventrikulære kjernen
Den paraventrikulære kjernen i hypothalamus er svært rik på synapser som inneholder en eksitatorisk aminosyre som nevrotransmitter (f.eks. glutaminsyre og asparaginsyre ) (Van Den Pol, 1991). Eksitatoriske aminosyrer i denne kjernen er involvert i en rekke funksjoner, inkludert ereksjon og seksuell atferd (Roeling et al., 1991; Melis et al., 1994b, 2000, 2004b). Følgelig ble N-metyl-d-asparaginsyre (NMDA), en selektiv agonist av NMDA-reseptorsubtypen, men ikke (±)-_-amino-3-hydroksy-5-metyl-isoksazol-4-propionsyre (AMPA), en selektiv agonist av AMPA-reseptorsubtypen eller (±)-trans(1)-amino-1,3-cyklopentandikarboksylsyre (ACPD), en selektiv agonist av den metabotropiske reseptorsubtypen, funnet å være i stand til å indusere penis ereksjon når den injiseres i den paraventrikulære kjernen hos fritt bevegelige rotter (Melis et al., 1994b). Den pro-erektile effekten av 948 MR Melis, A. Argiolas / Neuroscience and Biobehavioral Reviews 35 (2011) 939-955 NMDA ble forhindret av (+)MK-801, en ikke-konkurrerende NMDA-reseptorantagonist (Woodruff et al., 1987), injisert i den paraventrikulære kjernen (Melis et al., 1994b). I tråd med disse resultatene ble NMDA i telemetristudier rettet mot å overvåke intrakavernøs trykk funnet å være mye mer aktiv enn agonister av de andre eksitatoriske aminosyrereseptorsubtypene når den ble injisert i den paraventrikulære kjernen for å øke intrakavernøs trykk hos våkne eller bedøvede hannrotter (Zahran et al., 2000; Chen og Chang, 2003).
Som antydet ovenfor for oksytocin og dopamin, er det sannsynlig at NMDA-reseptorer som medierer penisereksjon er lokalisert i cellekroppene til oksytocinerge nevroner, siden eksitatoriske aminosyrenerveender treffer oksytocinerge cellekropper i den paraventrikulære kjernen (Van Den Pol, 1991). I analogi med det som ble funnet med dopaminreseptoragonister, er den pro-erektile effekten av NMDA tilsynelatende mediert av aktivering av oksytocinerg nevrotransmisjon, som oppheves av oksytocin-antagonisten d(CH2)5Tyr(Me)2-Orn8-vasotocin gitt icv, men ikke inn i den paraventrikulære kjernen (se Argiolas og Melis, 1995, 2004, 2005 og referanser deri). På samme måte er NMDA-indusert aktivering av oksytocinerg nevrotransmisjon også sekundær til aktiveringen av nitrogenoksid-syntase, siden NMDA-indusert penisereksjon forhindres av nitrogenoksid-syntasehemmere (N-nitro-N-metyll-argininmetylester og N-metyltio-l-citrullin) gitt i den paraventrikulære kjernen, og NMDA injisert i den paraventrikulære kjernen i doser som induserer penisereksjon, øker nitrogenoksidproduksjonen i den hypothalamiske kjernen (se Argiolas og Melis, 1995, 2004, 2005 og referanser deri). Når det gjelder dopaminreseptoragonister, kan den NMDA-induserte aktiveringen av nitrogenoksidsyntase også være sekundær til en økt Ca2+-tilstrømning i oksytocinerge cellelegemer gjennom de Ca2+-kanalkoblede NMDA-reseptorene, som vist i flere nevrale preparater (for en oversikt se Snyder, 1992; Southam og Garthwaite, 1993; Schuman og Madison, 1994 og referanser deri). Nitrogenoksid aktiverer igjen oksytocinerg nevrotransmisjon (se ovenfor). Opprinnelsen til glutamaterge projeksjoner som aktiverer paraventrikulære oksytocinerge nevroner som medierer penis ereksjon er ukjent, selv om noen nevroanatomiske og elektrofysiologiske bevis tyder på at de kan stamme, i det minste delvis, fra hippocampus (Saphier og Feldman, 1987; Chen et al., 1992). Selv om ytterligere arbeid er nødvendig for å bedre karakterisere opprinnelsen til de glutamaterge projeksjonene til den paraventrikulære kjernen, støttes involveringen av glutaminsyre i den paraventrikulære kjernen i kontrollen av penisereksjon og seksuell atferd tydelig av mikrodialysestudier. Følgelig økte de ekstracellulære konsentrasjonene av glutaminsyre og asparaginsyre i dialysatet oppnådd fra den paraventrikulære kjernen hos hannrotter som viste ikke-kontaktereksjoner når de ble satt i nærvær av utilgjengelige østrogen + progesteron-primede reseptive hunnrotter (Melis et al., 2004b), peniseksjoner som også medieres av aktivering av sentral oksytocinerg overføring (Melis et al., 1999a,b). Slike økninger ble funnet enda høyere når kopulasjon med den reseptive hunnen var tillatt (Melis et al., 2004a). I tråd med hypotesen om at det oppstår en økt aktivitet av eksitatoriske aminosyrer i den paraventrikulære kjernen under penisereksjon og kopulasjon, reduseres både ikke-kontaktereksjoner og kopulerende atferd (hvor penile ereksjoner oppstår i copula) ved blokade av NMDA-reseptorer i den paraventrikulære kjernen, og denne reduksjonen etterfølges av en reduksjon i økningen av nitrogenoksidproduksjon som oppstår i denne hypothalamiske kjernen i disse fysiologiske sammenhengene (Melis et al., 2000). En økning i ekstracellulær glutaminsyrekonsentrasjon sekundært til en redusert GABA-frigjøring fra GABAerge nerveender som påvirker eksitatoriske aminosyrerge synapser i sidestilling med oksytocinerge cellelegemer, ble også funnet i den paraventrikulære kjernen etter blokade av cannabinoid CB1-reseptorer av CB1-antagonisten SR 141761A, gitt i de laterale ventriklene eller direkte i den paraventrikulære kjernen i doser som induserer penisereksjon (se Succu et al., 2006; Castelli et al., 2007). En slik økning førte til aktivering av nitrogenoksidsyntase i cellekroppene til oksytocinerge nevroner, noe som økte nitrogenoksidproduksjonen. Nitrogenoksid aktiverer igjen oksytocinerge nevroner som medierer penisereksjon som beskrevet ovenfor. I tråd med en slik mekanisme ble SR 141761A-indusert penisereksjon redusert av blokade av NMDA-reseptorer og av nitrogenoksidsyntasehemmere, men ikke av blokade av dopamin- eller oksytocinreseptorer i den paraventrikulære kjernen, mens den ble forhindret av blokade av sentrale oksytocinreseptorer av oksytocinreseptorantagonister gitt icv (Melis et al., 2004a, 2006a).
3.3. Oxytocin-dopamin-interaksjon i det ventrale tegmentale området
Oksytokin induserer penile ereksjon når den injiseres i den kaudale delen av det ventrale tegmentale området på en doseavhengig måte(Melis et al., 2007). Den laveste aktive dosen injisert ensidalt var 20 ng, mens den høyeste dosen ble testet var 100 ng. Oxytocin-effekten medieres ved aktivering av oksytocinergreceptorer, da den seksuelle responsen avskaffes ved den tidligere injeksjon av oksytocinantagonisten d (CH2) 5Tyr (Me) 2-Orn8-vasotocin i det kaudale ventrale tegmentale området. Disse reseptorene er lokalisert i cellekroppene av dopaminerge nevroner, som hovedsakelig projiserer til skallet av kjernen accumbens. Følgelig viser (1) dobbeltimmunfluorescensstudier at oksytokinergiske fibre i det kaudale ventrale tegmentale området er i nær kontakt med cellene i dopaminerge neuroner, hvorav de fleste er positivt merket for tyrosinhydroksylase og inneholder retrogradsporeren Fluorogold tidligere injisert i skallet av nucleus accumbens (Melis et al., 2007) og (2) ventral tegmental-området oksytocin-fremkalt penis ereksjon skjer samtidig med en økning i konsentrasjonen av ekstracellulær dopamin i dialysatet oppnådd fra skallet av Nucleus accumbens (Melis et al., 2007). Oksytokininducert penis ereksjon skjer også samtidig med en økning i produksjon av nitrogenoksid i det ventrale tegmentale området, idet begge responsene er antagonisert ikke bare av d (CH2) 5Tyr (Me) 2-Orn8-vasotocin og av nitrogenoksydsyntaseinhibitoren S- metyl-tio-l-citrullin, men også av _-konotoxin, en spenningsavhengig Ca2 + -kanalblocker, og ved ODQ (1H- [1,2,4] oksadiazol [4,3-a] kinoxalin-1-en), en sterk inhibitor av guanylat syklase, alle gitt i det kaudale ventrale tegmentale området før oksytocin (Succu et al., 2008). Som mange av de fluorogold-merkede dopaminerge cellegruppene som ble kontaktet av oksytokinergiske fibre, viste seg å være positive for tyrosinhydroksylase i det kaudale ventrale tegmentale området, ble også positivt merket for nitrogenoksid-syntase og guanylat-syklase (Succu et al., 2008), oksytocin Indukt penis ereksjon kan medieres av følgende mekanisme. Aktiveringen av oksytocinergreceptorer i dopaminerge celleorganer av peptidet øker Ca2 + tilstrømningen inne i cellene av dopaminerge neuroner. Dette aktiverer nitrogenoksid-syntase, et Ca2 + -calmodulin-avhengig enzym, og derved øker produksjonen av nitrogenoksid. Nitrogen aktiverer i sin tur guanylatcyklase, noe som fører til økt konsentrasjon av cyklisk GMP. Syklisk GMP aktiverer dopaminerge nevroner som projiserer til nucleus accumbens. Rollen av cyklisk GMP i penile ereksjon indusert av oksytocin injisert i det kaudale ventrale tegmentale området, støttes også av evnen til 8-bromsyklisk GMP, en aktiv fosfodiesterase-resistent analog av cyklisk GMP, for å indusere penile ereksjon når den injiseres i caudal ventral tegmental område, og for å øke ekstracellulær dopamin i dialysatet fra nucleus accumbens (Succu et al., 2008; Melis et al., 2009a). Dette er i motsetning til mekanismen ved hvilken nitrogenoksyd aktiverer oksytokinergiske nevroner i den paraventrikulære kjernen, som er 8-bromsyklisk GMP, som ikke er i stand til å indusere penile ereksjon når injisert i denne kjernen (Melis og Argiolas, 1995b) (Fig. 2). Rollen til dopamin frigjort i nucleus accumbens i penile ereksjon indusert av oksytocin injisert i det caudale ventrale tegmentale området støttes av evnen til haloperidol, en potent dopaminreseptorantagonist injisert i nucleus accumbens, til å redusere oksytocinresponsen (Melis et al., 2007).Når det gjelder nevrale veier aktivert av dopamin i kjernen accumbens som fører til penis ereksjon, er disse fortsatt ukjente. De tilgjengelige dataene tyder imidlertid på at disse veiene aktiverer dopamin nevrotransmisjon i hypothalamus paraventrikulære kjernen. Følgelig oppstår oksytocininducert penile ereksjon samtidig med en økning i ekstracellulær dopamin, ikke bare i kjernen accumbens, men også i den paraventrikulære kjernen, og antagoniseres av dopaminreseptorantagonisten haloperidol injisert i den paraventrikulære kjernen (Melis et al., 2007). ENSamlet støtter disse resultatene ideen om at oksytocinergiske nevroner som stammer fra den paraventrikulære kjernen og projiserer til det kaudale ventrale tegmentale området, når de frigjør oxytocin i dette området, og dermed aktiverer et NO-cyklisk GMP-signal system, som igjen aktiverer mesolimbiske dopaminerge neuroner (Melis et al., 2007, 2009a; Succu et al., 2008). Dopamin frigjort i nucleus accumbens aktiverer i sin tur neurale veier som fører til aktivering av dopaminerge neurorer, som stimulerer paraventrikulære oksytocinergiske nevroner som projiserer til ryggmargsmedisinert penis ereksjon. Samtidig kan dopamin frigjort i den paraventrikulære kjernen også aktivere oksytocinergiske nevroner som projiserer til ekstrahypothalamiske hjerneområder som det ventrale tegmentale området, hippocampus, amygdala og kanskje andre hjerneområder.
Som nevnt ovenfor, i tråd med denne hypotesen, øker apomorfin injisert i den paraventrikulære kjernen i en dose som induserer penis ereksjon også den ekstracellulære dopaminkonsentrasjonen i nucleus accumbens, en effekt som reduseres av oksytocinreseptorantagonisten d(CH2)5Tyr(Me)2-Orn8-vasotocin injisert i det ventrale tegmentale området (Succu et al., 2007; Melis et al., 2009a). Sammen kan de ovennevnte nevrale banene utgjøre en hypotetisk nevral krets som involverer dopamin, oksytocin og andre nevrotransmittere (f.eks. glutaminsyre, se nedenfor) som ikke bare påvirker seksuell ytelse, men også seksuell motivasjon og seksuell belønning (se avsnitt 4).
3.4. Oksytokin-glutaminsyreinteraksjon i hippokampus ventral subikulum
Oksytokin induserer penile ereksjon når den injiseres i ventralet, men ikke i dorsal subikulumet, på en doseavhengig måte (Melis et al., 2009b). Den seksuelle responsen formidles ved stimulering av oksytocinreceptorer, avskaffes ved tidligere injeksjon av d (CH2) 5Tyr (Me) 2-Orn8-vasotocin gitt til samme sted for oksytocin, som finnes i andre hjerneområder (se ovenfor) . Når det gjelder lokalisering av disse reseptorene, antyder de tilgjengelige data at de er lokalisert i cellekroppene av nevroner som er rike på nitrogenoksid-syntase.
Mikrodialysestudier viser følgelig at oksytocinindusert penisereksjon oppstår samtidig med en økning i nitrogenoksidproduksjon i det ventrale subikulum, og denne økningen oppheves ikke bare ved forutgående injeksjon av nitrogenoksidsyntasehemmeren S-metyl-tio-l-citrullin og av nitrogenoksidfjerneren hemoglobin, men også av d(CH2)5Tyr(Me)2-Orn8-vasotocin, alle gitt på samme sted for oksytocin i doser som motvirker penisereksjon (Melis et al., 2010). Enda viktigere er det at oksytocinindusert penisereksjon også oppstår samtidig med en økning i konsentrasjonen av ekstracellulær glutaminsyre i det ventrale subikulum, som bare delvis motvirkes av den ikke-konkurrerende NMDA-reseptorantagonisten (+)MK-801 gitt i det ventrale subikulum (Melis et al., 2010). Samlet sett tyder disse resultatene på at nydannet nitrogenoksid, ved å fungere som en intercellulær budbringer, aktiverer glutaminsyre-nevrotransmisjon som fører til penisereksjon, muligens gjennom nevrale efferente projeksjoner fra det ventrale subikulum til ekstra-hippocampale hjerneområder. I tråd med denne hypotesen induserer NMDA injisert i det ventrale subikulum penisereksjon på en doseavhengig måte, og denne effekten motvirkes fullstendig av den foregående injeksjonen på samme sted av (+)MK-801, men ikke av S-metyl-tio-l-citrullin, hemoglobin eller d(CH2)5Tyr(Me)2-Orn8-vasotocin (Melis et al., 2010). Når det gjelder de nevrale efferente banene som projiserer til ekstra-hippocampale hjerneområder aktivert av eksitatoriske aminosyrer (dvs. glutaminsyre) i det ventrale subikulum, er det sannsynlig at disse er glutamaterge, i likhet med de fleste hippocampale efferente projeksjoner. For øyeblikket kan det bare antydes at disse projeksjonene modulerer aktiviteten til mesolimbiske dopaminerge nevroner, som igjen modulerer aktiviteten til incerto-hypothalamiske dopaminerge nevroner i den paraventrikulære kjernen, noe som fører til aktivering av oksytocinerge nevroner som medierer penis ereksjon, som allerede diskutert (se ovenfor).
Følgelig skjer penile ereksjon indusert av ventral subikulum oksytocin samtidig med en økning i konsentrasjonen av ekstracellulær dopamin i skallet til nucleus accumbens, og denne økningen, i likhet med penile ereksjon, oppheves av d(CH2)5Tyr(Me)2-Orn8-vasotocin gitt i ventral subikulum før oksytocin (Melis et al., 2009b). Dessuten, siden ventral subikulum-indusert oksytocin-indusert penile ereksjon også reduseres av (+)MK-801 injisert i det ventrale tegmentale området, men ikke i nucleus accumbens (Melis et al., 2009b) og forekommer samtidig med en økning av ekstracellulær glutaminsyre i det ventrale tegmentale området, men ikke i nucleus accumbens, ettersom begge responsene oppheves av d(CH2)5Tyr(Me)-Orn8-vasotocin, injisert i det ventrale subikulum før oksytocin (se fig. 3), er det sannsynlig at aktiveringen av mesolimbiske dopaminerge nevroner er sekundær til en økt glutamaterg nevrotransmisjon i det ventrale tegmentale området. Dette antyder at det finnes en glutaminsyre-dopamin-interaksjon som kontrollerer penile ereksjon i det ventrale tegmentale området. Ytterligere studier er nødvendige for å fastslå om de pro-erektil efferente glutameterge veiene fra subikulum til det ventrale tegmentale området er direkte eller indirekte, dvs. gjennom prefrontal cortex eller andre hjerneområder (se Melis et al., 2009b og referanser deri). Siden den paraventrikulære kjernen også mottar glutamaterge projeksjoner fra hippocampus (se ovenfor og Saphier og Feldman, 1987), og glutaminsyre aktiverer paraventrikulære oksytocinerge nevroner, inkludert de som projiserer til det ventrale tegmentale området (se Argiolas og Melis, 2005 og referanser deri), og oksytocin i det ventrale tegmentale området induserer penis ereksjon og øker aktiviteten til mesolimbiske dopaminerge nevroner (se ovenfor), er det fristende å spekulere i at paraventrikulære oksytocinerge nevroner også kan være involvert, i det minste delvis, i aktiveringen av mesolimbiske dopaminerge nevroner ved oksytocin injisert i det ventrale subikulum (se avsnitt 4).
4. Avsluttende kommentarer
Studiene som er gjennomgått ovenfor bekrefter og utvider tidlige funn som viser at oksytocin hos hannrotter spiller en nøkkelrolle i den sentrale kontrollen av penisereksjon på nivå med den paraventrikulære kjernen i hypothalamus og ryggmargen. Spesielt viser de nyeste studiene at oksytocin påvirker penisereksjon også ved å virke i andre hjerneområder, dvs. det ventrale tegmentale området, det ventrale subikulum og den posteromediale kortikale kjernen i amygdala.
På paraventrikulært nivå er det viktigste nye funnet kanskje oppdagelsen av uttrykket av alle dopaminreseptorer i D2-familien (D2, D3 og D4) i cellekroppene til oksytocinerge nevroner i den paraventrikulære kjernen (og i den supraoptiske kjernen og det mediale preoptiske området) (Baskerville og Douglas, 2008; Baskerville et al., 2009). Dette gir sterk nevroanatomisk støtte til hypotesen om at dopamin- og dopaminreseptoragonister kan aktivere direkte oksytocinerge nevroner involvert i erektil funksjon og som projiserer ikke bare til ryggmargen, men også til ekstrahypothalamiske hjerneområder . I denne forbindelse er det også viktig å oppdage at dopaminreseptoragonist-indusert økning i intrakavernøs trykk reduseres ved blokade av oksytocinerge reseptorer i lumbosakral ryggmarg (Baskerville et al., 2009). Selv om slike bevis er innhentet hos bedøvede hannrotter, bekrefter funnet aktiveringen av en paraventrikulo-spinal oksytocinerg nedadgående bane involvert i dopaminreseptoragonist-indusert penisereksjon. Det må imidlertid fortsatt fastslås om penisereksjon indusert av stimulering av dopaminreseptorer som finnes i oksytocinerge cellelegemer er sekundær til aktiveringen av en spesifikk dopaminreseptor-subtype av D2-familien (D2, D3 eller D4), eller om disse reseptorsubtypene samarbeider om å modulere den erektile responsen, muligens på forskjellige måter avhengig av konteksten der penisereksjonen oppstår (se Moreland et al., 2004; Enguehard-Gueiffier et al., 2006; Melis et al., 2006a,b; Löber et al., 2009; Collins et al., 2009; Depoortère et al., 2009; Baskerville et al., 2009).
Et annet viktig nytt funn er at oksytocin induserer penile ereksjon når det injiseres ikke bare i den paraventrikulære kjernen eller CA1-feltet i hippocampus, men også inn i det ventrale tegmentale området, det ventrale subikulum og den posterjedielle kortikale kjernen i amygdalaen. Disse hjerneområdene ble ikke testet i de tidligere studier som viste at oksytocin økte spontane penile ereksjonsepisoder hos hannrotter, selv om de mottok som lumbo-sacral ryggradssyrefokinergiske fremspring fra den paraventrikulære kjernen. Oksytokin ble faktisk funnet i stand til å øke spontane penile ereksjonsepisoder, som forekommer hos voksne hannrotter i fravær av seksuelle stimuli, som de som kommer fra nærværet av en tilgjengelig eller utilgjengelig mottakelig (østrogen-progesteron-primet) ovariektomisert hunrotte eller manipulering av kjønnsorganene, når de injiseres inn i paraventrikulær kjernen og CA1-feltet i hippocampus, men ikke i dorsal subikulum, lateral septum, kaudatkjernen, det mediale preoptiske området, den ventromediale kjerne og den supraoptiske kjernen (Melis et al. , 1986). I alle disse studiene ble penile ereksjon vanligvis regnet når penis kom ut av peniskappen ved en observatør som ikke var klar over de givne behandlingene direkte under forsøket eller senere ved å observere eksperimentet som ble tatt opp på et videobånd med et videokameraapparat. Hver penis ereksjon episode varer for 0.5-1 min og er vanligvis ledsaget av penis grooming og / eller hip flexions. Det gjøres ikke noe eksperiment i disse rotter for å fastslå effekten av seksuell erfaring, alder eller om disse rotter kan deles inn i lave eller høye respondenter til den pro-erektile effekten av oksytocin injisert i de forskjellige hjernerområdene. Dette gjelder også for flertallet av studier av den pro-erektile effekten av andre neuropeptider og legemidler som øker spontane penis ereksjonsepisoder, inkludert dopaminagonister, excitatoriske aminosyrer, ACTH-MSH, hexarelin og VGF peptider. Imidlertid er den pro-erektile effekten av disse forbindelsene blitt gjentatt bekreftet ved hjelp av telemetriske metoder som bestemmer forekomsten av penile ereksjon ved økningen i intrakavernøst trykk som oppstår spontant eller etter administrering av disse forbindelsene ved forskjellige veier, dvs. systemisk, intracerebroventricularly eller direkte inn i spesifikke hjernekjerner, etter implantatet av en trykkmikrotransducer direkte inn i kvernøs korpora (se Bernabè et al., 1999). I det ventrale tegmentale området fremkaller ventral subikulum og amygdalas posteromediale kjerne også oksytocin penile ereksjon ved å virke på oksytocinergreceptorer. Dette fører til aktivering av mesolimbiske dopaminerge nevroner med opprinnelse i det ventrale tegmentale området og projiserer til skallet til kjernen accumbens, som målt ved økningen i ekstracellulær dopamin-konsentrasjon i dialysatet oppnådd fra skallet av nukleotilførsler og ved reduksjonen i erektilresponsen indusert av peptidet injisert i disse ekstrahypothalamiske områdene, funnet etter blokkaden av dopaminerge reseptorer i Nucleus accumbens (se nedenfor). Når det gjelder mekanismer som aktiveres ved stimulering av oksytocinergreceptorer i disse hjernene, som fører til aktivering av mesolimbiske dopaminerge neuroner og til penis ereksjon, er de best avklart de som forekommer i det kaudale ventrale tegmentale området. Faktisk viser her farmakologiske og immuno-fluorescensresultater at oksytocin-nerveendringer påvirker cellelegemene av dopaminerge nevroner som projiserer til skallet til nukleotilførselen (Melis et al., 2007, 2009a, Succu et al., 2008). Mange av disse nevronene er rike på nitrogenoksydsyntase og i guanylat-syklase. Stimuleringen av oksytocinergreceptorer i cellekroppene til disse dopaminergne nevronene forårsaker aktiveringen av nitrogenoksydsyntase som fører til økt produksjon av nitrogenoksid. Nitrogenoksyd aktiverer i sin tur guanylat-syklase, hvorved konsentrasjonen av cyklisk GMP økes, som fører til aktivering av mesolimbiske dopaminerge neuroner og til frigjøring av dopamin i nukleotilførselen, målt ved økningen i ekstracellulær dopamin i dialysatet fra nukleinsammenbindene oppnådd ved intra-cerebral mikrodialyse (Succu et al., 2008 ). Dopamin frigjort i kjernen accumbens aktiverer i sin tur nevrale veier som fører til penis ereksjon. Dette støttes av evnen til dopaminreseptorantagonister haloperidol og / eller cis-flupentixol injisert i nucleus accumbens for å redusere ventral tegmental området oksytocin-indusert penile ereksjon (Succu et al., 2008). En av pro-erektilbanene ser ut til å aktivere incerto-hypotalamiske dopaminerge nevroner, spesielt de som projiserer til cellene i paraventrikulære oksytocinergiske neuroner. Faktisk øker oksytocin som injiseres i det kaudale ventrale tegmentale området ekstracellulært dopamin, ikke bare i nucleus accumbens, men også i den paraventrikulære kjernen, og blokkaden av dopaminreseptorer i den paraventrikulære kjernen reduserer signifikant ventral tegmental-området oksytocininducert penile ereksjon (Succu et al. , 2007, 2008; Melis et al., 2007, 2009a). Eksistensen av disse nucleus accumbens dopamin paraventricular dopamin paraventricular oxytocin-ventral tegmentale området oxytocin-dopamin lenker er også foreslått av evnen til en pro-erektil dose av apomorfin og D4-reseptoragonisten PD 168077 injisert i paraventrikulær kjernen for å øke ekstracellulær dopamin i skallet til nucleus accumbens (Succu et al., 2007), respons som avskaffes av d (CH2) 5Tyr (Me) -Orn8-vasotocin gitt i det ventrale tegmentale området (Melis et al., 2009a, se også nedenfor). Imidlertid er det nødvendig med ytterligere arbeid for å identifisere nevrale veier som forbinder kjernen med det incerto-hypotalamiske dopaminerge systemet.
Mekanismen ved hvilken oxytocin inducerer penile ereksjon og aktiverer mesolimbiske dopaminerge neuroner når de injiseres i ventral subikulum eller inn i amygdalas posteromediale kjerne, forstås kun delvis for øyeblikket. På disse områdene aktiverer oksytocin sine egne reseptorer som fører til aktivering av nitrogenoksyd-syntase, og derved øker produksjonen av nitrogenoksid. Nitrogenoksyd aktiverer igjen ukjente efferente fremspring, som tilsynelatende øker glutamatergisk nevrotransmisjon i det ventrale tegmentale området. Glutaminsyre stimulerer deretter mesolimbic dopaminerge neuroner som fører til penis ereksjon.Denne hypotese støttes hovedsakelig ved evnen til oksytocin injisert i den ventrale subiculum for å øke ekstracellulære glutaminsyre i det ventrale tegmentale område (fig. 3) og den ikke-konkurransedyktige NMDA-reseptorantagonisten (+) MK-801 injisert i det ventrale tegmentale området, men ikke i nucleus accumbens, for å redusere penile ereksjon indusert av oksytocin injisert enten i ventral subikulum eller inn i den posteromediale kjerne av amygdalaen (Melis et al., 2009b). For øyeblikket er det flere detaljer tilgjengelig for ventral subikulumoksytocin-indusert penile ereksjon. Her virker oksytocininducert penile ereksjon sekundær til aktiveringen av oksytocinergreceptorer som er lokalisert i cellekroppene av nitrogenoksid-syntaseholdige nevroner. Dette medfører en økning i produksjonen av nitrogenoksyd, som aktiverer glutamatergisk nevrotransmission ved å fungere som en intercellulær messenger med en mekanisme som ligner den som er beskrevet for langsiktig potensiering (se Snyder, 1992, Southam og Garthwaite, 1993, Schuman og Madison, 2004) . I tråd med denne hypotesen oppstår oksytokininducert penile ereksjon samtidig med en økning i ekstracellulær glutaminsyre i dialysatet fra ventral subikulum, og stimulering av eksitatoriske aminosyre-reseptorer i det ventrale subikulum ved NMDA inducerer penile ereksjon. Glutaminsyre i sin tur aktiverer nevrale efferente fremspring, noe som fører til aktivering av mesolimbiske dopaminergiske neuroner i det ventrale tegmentale område, som angitt ovenfor. Hvis disse mekanismene er operative, er også i amygdalas posteromediale kjerne ukjent for tiden. Videre er det nødvendig med ytterligere studier for å bevise at (1) oksytokinergiske nerveender og reseptorer i ventral subikulum og i amygdalas posteromediale kjerne er lokalisert i cellegrupper av nevroner som inneholder nitrogenoksid-syntase (2) hvis disse neuronene til slutt under kontroll av eksitatoriske aminosyre (glutamatergiske) synapser og (3) for å identifisere signalsystemet aktivert av nitrogenoksid. I dette henseende er det bemerkelsesverdig at oksytocins evne til å øke nitrogenoksyd-syntaseaktiviteten i cellene av dopaminerge neuroner i det kaudale ventrale tegmentale området og av fremdeles ukjente nevroner i det ventrale subikulum og amygdalas posteromediale kjerne, minner om oksytocins evne til å aktivere nitrogenoksyd-syntase i celllegemene av oksytocinergiske nevroner i den paraventrikulære kjernen (Melis et al., 1997). Imidlertid, mens det i det ventrale tegmentale området fører til økt produksjon av nitrogenoksid i cellene av dopaminerge nevroner, aktiverer disse nevronene ved å aktivere guanylat-syklase og økende syklisk GMP, forekommer dette ikke i den paraventrikulære kjernen. Følgelig fremkaller 8-bromsyklisk GMP injisert i paraventrikulær kjernen ikke penis ereksjon, mens det gjør det når det injiseres i det ventrale tegmentale området. En annen signalvei som er forskjellig fra det nitrogenoksyd-cykliske GMP-systemet, blir så involvert i paraventrikulært nivå ved aktivering av oksytokinergiske nevroner som medierer penile ereksjon av endogent og / eller eksogent nitrogenoksid (Melis og Argiolas, 1995b; Melis et al., 1997) . 1). På den annen side synes syklisk GMP i det ventrale tegmentale området å spille også en nøkkelrolle i aktiveringen av mesolimbiske dopaminerge nevroner, og i økningen i ekstracellulær dopamin som oppstår i dialysatet oppnådd fra skallet til nukleinsammenhengene av hannrotter valgt for å vise eller ikke vise Løse penisereksjoner da satt i nærvær av en utilgjengelig ovariektomisert mottakelig (østrogen + progesteron behandlet) hunnrotte. I disse eksperimentelle forholdene oppdager man hos mannlige rotter som viser ikke-kontakt-penis ereksjoner, en økning i ekstracellulær dopamin-konsentrasjon som forventet, og denne økningen økes ytterligere, selv om det bare er beskjedent, ved fosfodiesterasehemmere gitt i det kaudale ventrale tegmentale området (Sanna et al., 2009). I motsetning til dette, hos hannrotter som ikke viser ikke-kontaktereksjoner, hvor det ikke finnes noen merkbar økning i ekstracellulær dopamin i nucleus accumbens, finner man en markant økning i ekstracellulær dopaminkonsentrasjon når fosfodiesterasehemmere gis i det caudale ventrale tegmentale området, og det observeres ikke-kontaktereksjoner (Sanna et al., 2009).
Evnen til oksytocin som injiseres i det ventrale tegmentale området, i det ventrale subikulumet og i den posterjedielle kortikale kjernen i amygdala, sammen med dopaminagonister injisert i paraventrikulær kjernen, for å indusere penile ereksjon og å aktivere mesolimbiske dopaminerge neuroner fortjener noen kommentar . For det første kan mekanismer som ligner på de som er nevnt ovenfor, være operative når penis ereksjon oppstår i fysiologiske sammenhenger, som for eksempel under kopiering (når det oppstår penile ereksjoner) eller i forbindelse med penis ereksjoner uten kontakt. Disse ereksjonene er feromon-medierte penis ereksjoner som ikke kan skille seg fra de som induseres av stoffer eller oksytocin, som oppstår når seksuelt potente mannlige rotter blir satt i nærvær av en utilgjengelig mottakelig (ovariectomized østrogen + progesteron-primet) rotte og betraktes som en indeks for seksuell arousal (Sachs, 1997, 2007). Faktisk, selv om disse resultatene ikke viser at oksytocin i disse områdene spiller en rolle i penile ereksjon som forekommer i fysiologiske sammenhenger eller etter legemiddeladministrasjon, legger de til ytterligere styrke til tidlige funn som tyder på at disse hjerneområdene tilhører de der oksytocin gitt sentralt virker for å øke Ikke bare spontane penis ereksjon episoder sett etter pro-erektil medisiner, men også for å forbedre mannlige (og kvinnelige) seksuelle oppførsel (se Argiolas og Melis, 2004 og referanser deri). Følgelig øker oksytocinkonsentrasjonen i hippocampus av hannrotter behandlet med en pro-erektil dose av apomorfin, en klassisk dopaminagonist (Melis et al., 1990) og d (CH2) 5Tyr (Me) -Orn8-vasotocin, som blokkerer oksytocin reseptorer, er ekstremt effektiv ikke bare ved svekkelse av copulatorisk oppførsel (Argiolas et al., 1987a), men også den tilretteleggende effekten av apomorfin på mannlig kopulatorisk oppførsel (Argiolas et al., 1987b) hos seksuelt potente mannlige rotter, der i copula penile erection skje. d (CH2) 5Tyr (Me) -Orn8-vasotocin er også ekstremt kraftig ved å redusere ikke-kontakt-ereksjoner hos seksuelt potente mannlige rotter, når de er gitt i nanogrammengder i laterale ventrikler, men ikke inn i PVN (Melis et al., 1999a).
For det andre spiller mesolimbiske dopaminerge nevroner en nøkkelrolle i de motiverende og givende egenskapene til naturlige forsterkende stimuli, som mat, vann og seksuell aktivitet (Fibiger og Phillips, 1988; Wise og Rompre, 1989; Everitt, 1990). Spesielt antas dopamin som frigjøres fra disse nevronene å mediere transponeringen av de motivasjonsmessige aspektene ved naturlige stimuli til målrettet atferd, for eksempel i tilfelle seksuell aktivitet, søken etter en seksuell partner og samleie for å oppnå belønning og tilfredsstillelse (Goto og Grace, 2005). Følgelig øker ekstracellulær dopaminkonsentrasjon i dialysat fra nucleus accumbens hos seksuelt potente hannrotter under eksponering for en utilgjengelig ovariektomisert østrogen + progesteron-primet reseptiv hunnrotte, og en slik økning var enda høyere når hannrotten fikk lov til å kopulere med den reseptive hunnrotten (Pfaus og Everitt, 1995).
For det tredje støtter foreliggende resultater hypotesen om at et neuralt krets forbinder den paraventrikulære kjerne med det ventrale tegmentale området direkte eller indirekte (gjennom det ventrale subikulumet og / eller den postemediale kortikalkjernen til amygdalaen) og kjernen accumbens, og herfra gjennom ukendt veier tilbake igjen til den paraventrikulære kjernen for å kontrollere aktiviteten til oksytocinergiske nevroner som projiserer til ryggmargsmedisinert penis ereksjon og av oksytocinergiske nevroner som projiserer til det ventrale tegmentale området, det ventrale subikulumet og den posterjedielle kortikale kjernen i amygdalaen, og modulerer på denne måten aktivitet av mesolimbic dopaminerge neuroner (Fig. 4). Denne komplekse nevrale kretsen kan spille en rolle i integrasjonen av nevrale aktiviteter som er involvert i kontrollen av de consummative (erektil-ejakulatoriske) og foregående (motiverende og givende) aspekter av mannlig seksuell oppførsel i fysiologiske sammenhenger. Faktisk øker ekstracellulær dopamin i kjernen accumbens (Pfaus og Everitt, 1995) og i den paraventrikulære kjernen av seksuelt potente mannlige rotter under eksponering for en utilgjengelig mottakelig hunrot, når ikke-kontakts ereksjoner oppstår, og enda mer når kopiering er tillatt, for eksempel når det oppstår penis ereksjoner i penis (Melis et al., 2003). Selv om ytterligere studier er nødvendige for å avklare rollen som endogen oxytocin i det ventrale tegmentale området, ventral subikulum og amygdala under ikke-kontakt-ereksjoner og seksuell oppførsel, kan det da være rimelig å anta at denne hypotetiske nevrale kretsen, samtidig som den bidrar til forbruksmessige aspekter ved seksuell oppførsel, kan samtidig aktivere det mesolimbiske dopaminerge systemet som gir et neuralt substrat for å forklare de givende egenskapene til seksuell aktivitet (Everitt, 1990, Pfaus og Everitt, 1995). I denne forbindelse er det bemerkelsesverdig at det mesolimbiske dopaminerge systemet aktivert av oksytocin injisert i det ventrale tegmentale området, er det samme aktivert av misbrukemidler som opiater, cannabinoider, amfetamin, kokain og alkohol (Tanda et al., 1997), og at oksytocin ble funnet i stand til å redusere toleranse og avhengighet av kokain, morfin, alkohol og cannabinoider (Kovacs et al., 1998, Cui et al., 2001). Som konklusjon ser det ut som at oksytokin frigjort ikke bare i ventral tegmentalområdet, men også i ventral subikulum og den posterjedielle kortikale kjernen i amygdala, kan aktivere mesolimbiske dopaminerge neuroner, som kan være involvert i appetitive og givende effekter av seksuell aktivitet . Aktiveringen av mesolimbiske dopaminerge nevroner kan være direkte gjennom oksytokinergreceptorer i cellekroppene av mesolimbiske dopaminerge neuroner, eller indirekte gjennom aktivering av glutaminsyre-neurotransmisjon i det ventrale tegmentale området.
Dopamin frigjort i nucleus accumbens-skallet modulerer i sin tur aktiviteten til de incerto-hypotalamiske dopaminerge nevronene i den paraventrikulære kjernen som forårsaker enten penis ereksjon (via aktivering av oksytocinergiske nevroner som rager mot ryggmargen) eller seksuell motivasjon og belønning (via aktivering av oksytocinergisk nevroner som projiserer til det ventrale tegmentale området, det ventrale subikulum eller den posterjedielle kortikale kjernen i amygdalaen). Siden dopamin også frigjøres i nukleo accumbens skallet og i paraventrikulær kjernen når penile ereksjon oppstår i fysiologiske sammenhenger (f.eks. Ikke-kontakt ereksjoner og kopiering) (Succu et al., 2007, Melis et al., 2003, 2007), er det sannsynligvis at sentrale oksytocinergiske nevroner deltar i nevrale kretser som medierer en interaksjon mellom mesolimbisk og det incerto-hypotalamiske dopaminerge systemet. Disse nevrale kretser kan spille en rolle ikke bare i den konsumatorisk fase av seksuell oppførsel (f.eks penil ereksjon og kopulasjon), men også i seksuell motivasjon, seksuell opphisselse og belønning.
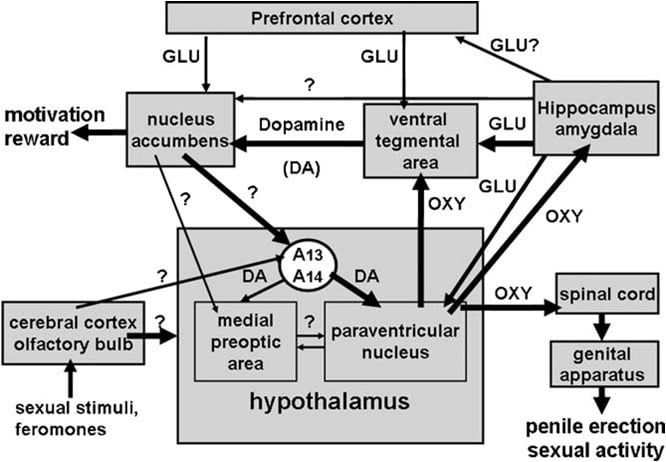
Skjematisk fremstilling av en hypotetisk nevral krets som involverer oksytocin som påvirker seksuell motivasjon, belønning og seksuell ytelse, som antydet av resultatene i dette kapittelet og tidligere rapporter. Oksytocinerge nevroner som stammer fra den paraventrikulære kjernen og projiserer til ryggmargen når de aktiveres for eksempel av dopamin og glutaminsyre (men også av andre nevrotransmittere og/eller nevropeptider), letter ereksjon og seksuell ytelse ved å aktivere oksytocinerge nevroner som projiserer til ryggmargen. Dopamin og glutaminsyre (men også nevrotransmittere og nevropeptider) i den paraventrikulære kjernen aktiverer også oksytocinerge nevroner som projiserer til det ventrale tegmentale området, og aktiverer dermed mesolimbiske dopaminerge nevroner som projiserer til nucleus accumbens, og modulerer seksuell motivasjon og belønning. Dopamin som frigjøres i nucleus accumbens (NA) aktiverer igjen ukjente nevrale baner, som øker aktiviteten til incerto-hypothalamiske dopaminerge nevroner (som stammer fra A13-A14-gruppene til Dahlstrom og Fuxe) som blant annet påvirker oksytocinerge nevroner, inkludert de som projiserer til ryggmargen, noe som fører til ereksjon av penis. Denne kretsen kan også aktiveres av oksytocin injisert ikke bare i det kaudale ventrale tegmentale området, men også i det ventrale subikulum og i amygdala, som også mottar en oksytocinerg innervasjon fra den paraventrikulære kjernen, muligens gjennom direkte eller indirekte glutamaterg efferent til det ventrale tegmentale området, noe som fører til modulering av både seksuell motivasjon og ereksjon av penis. Til slutt kan kretsene ovenfor også aktiveres av seksuelle stimuli og feromoner, siden ekstracellulær dopamin og glutaminsyre øker i den paraventrikulære kjernen (og i det mediale preoptiske området) under feromonmedierte ikke-kontakt ereksjoner og kopulering (for passende referanser, se referanselisten).
Bekreftelser Dette arbeidet ble delvis støttet av et tilskudd fra det italienske departementet for universitet og forskning til AA og MRM
Referanser
Andersson, KE, 2001. Farmakologi av penile ereksjon. Pharmacol. Rev 53, 417-450. Argiolas, A., 1994. Nitrogenoksyd er en sentral mediator i penis ereksjon. Neurofarmakologi 33, 1339-1344. Argiolas, A., 1999. Neuropeptider og seksuell oppførsel. Neurosci. Biobehav. Rev 23, 1127-1142. Argiolas, A., Gessa, GL, 1991. Sentrale funksjoner av oksytocin. Neurosci. Biobehav. Rev 15, 217-231. Argiolas, A., Melis, MR, 1995. Neuromodulasjon av penis ereksjon: En oversikt over neurotransmitters og nevropeptids rolle. Prog. Neurobiol. 47, 235-255. Argiolas, A., Melis, MR, 2004. Rollen av oxytocin og den paraventrikulære kjernen i den seksuelle oppførelsen av hannpattedyr. Physiol. Behav. 83, 309-317. Argiolas, A., Melis, MR, 2005. Sentral kontroll av penis ereksjon: rolle av den paraventrikulære kjernen i hypothalamus. Prog. Neurobiol. 76, 1-21. Argiolas, A., Collu, M., Gessa, GL, Melis, MR, Serra, G., 1988. Oksytocinantagonisten d (CH2) 5Tyr (Me) -Orn8-vasotocin motvirker mannlig kopulatorisk oppførsel hos rotter. E. J. Pharmacol. 149, 389-392. Argiolas, A., Collu, M., D'Aquila, P., Gessa, GL, Melis, MR, Serra, G., 1989. Apomorfinstimulering av mannlig kopulatorisk oppførsel forhindres av oksytocinantagonisten d (CH2) 5Tyr (Me) -Orn8-vasotocin hos rotter. Pharmacol. Biochem. Behav. 33, 81-83. Argiolas, A., Melis, MR, Gessa, GL, 1985. Intraventrikulær oksytocin induserer gjevning og penis ereksjon hos rotter. E. J. Pharmacol. 117, 395-396. Argiolas, A., Melis, MR, Gessa, GL, 1986. Oksytokin: En ekstremt kraftig inducer av penis ereksjon og gjentatt i hannrotter. E. J. Pharmacol. 130, 265-272. Argiolas, A., Melis, MR, Mauri, A., Gessa, GL, 1987a. Paraventrikulær kjernelesion forhindrer gjentakelse og penis ereksjon indusert av apomorfin og oksytocin, men ikke av ACTH hos rotter. Brain Res. 421, 349-352. Argiolas, A., Melis, MR, Vargiu, L., Mauri, A., Gessa, GL, 1987b. d (CH2) 5Tyr (Me) -Orn8-vasotocin, en potensiell oksytocinantagonist, motvirker penis ereksjon og gjengning indusert av oksytocin og apomorfin, men ikke av ACTH 1-24. E. J. Pharmacol. 134, 221-224. Argiolas, A., Melis, MR, Stancampiano, R., Gessa, GL, 1990. _ -Konotoxin forhindrer apomorfin- og oksytocin-indusert penis ereksjon og gjentas i hannrotter. Pharmacol. Biochem. Behav. 37, 253-257. Arletti, R., Bertolini, A., 1985. Oksytokin stimulerer lordoseadferd hos hunrotter. Neuropeptider 6, 247-255. Arletti, R., Bazzani, C., Castelli, M., Bertolini, A., 1985. Oksytokin forbedrer mannlig kopulatorisk ytelse hos rotter. Horm. Behav. 19, 14-20. Arletti, R., Benelli, A., Bertolini, A., 1990. Seksuell oppførsel av aldrende hanrotter stimuleres av oksytocin. E. J. Pharmacol. 179, 377-382. Arletti, R., Calzà, L., Giardino, L., Benelli, A., Cavazzutti, E., Bertolini, A., 1997. Seksuell impotens er forbundet med redusert produksjon av oksytocin og økt produksjon av opioidpeptider i hypothalamus paraventrikulære kjernen. Neurosci. Lett. 233, 65-68. Bancila, M., Giuliano, F., Rampin, O., Mailly, P., Brisorgueil, MJ, Clas, A., Verge, D., 2002. Bevis for direkte projeksjon fra hypothalamus paraventrikulære kjernen til formodede serotoninergiske nevroner i kjernen paragigantocellularis involvert i kontrollen av ereksjon hos rotter. E. J. Neurosci. 16, 1240-1249. Burnett, AL, Lowenstein, CJ, Bredt, DS, Chang, TSK, Snyder, SH, 1992. Nitrogenoksyd: en fysiologisk mediator i penis ereksjon. Vitenskap 257, 401-403. Baskerville, TA, Douglas, AJ, 2008. Interaksjon mellom dopamin og oksytocin i kontrollen av seksuell oppførsel. Prog. Brain Res. 170, 277-289. Baskerville, TA, Allard, J., Wayman, C., Douglas, AJ, 2009. Dopamin-oksytocin-interaksjon i penis ereksjon. E. J. Neurosci. 30, 2151-2164. Benelli, A., Bertolini, A., Poggioli, R., Cavazzutti, E., Calzà, L., Giardino, L., Arletti, R., 1995. Nitrogenoksyd er involvert i mannlig seksuell oppførsel av rotter. E. J. Pharmacol. 294, 505-510. Bernabè, J., Rampin, O., Sachs, BD, Giuliano, F., 1999. Intrakavernøst trykk under ereksjon hos rotter: En integrert tilnærming basert på telemetrisk opptak. Er. J. Physiol. 276, R441-R449. Bitner, RS, Nikkel, AL, Otte, S., Martino, B., Barlow, EH, Bhatia, P., Stewart, AO, Brioni, JD, Decker, MW, Moreland, RB, 2006. Dopamin D4-reseptorsignalisering i rotteparaventrikulærhypothalamukjernen: Bevis for naturlig kobling som involverer umiddelbar tidlig geninduksjon og mitogenaktivert proteinkinasefosforylering. Neurofarmakologi 50, 521-531. Brioni, JD, Moreland, RB, Cowart, M., Hsieh, GC, Stewart, AO, Hedlund, P., Donnelly-Roberts, DL, Nakane, M., Lynch 3rd., J., Kolasa, T., Polakowski , JS, Osinski, MA, Marsh, K., Andersson, KE, Sullivan, JP, 2004. Aktivering av dopamin D4-reseptorer med ABT-724 inducerer penile ereksjon hos rotter. Proc. Natl. Acad. Sci. USA 101, 6758-6763. Buijs, RM, 1978. Intra- og ekstra-hypotalamisk vasopressin og oksytocinveier i rotte. Cell Vev Res. 192, 423-435. Buijs, RM, Geffard, M., Pool, CW, Hoorneman, EMD, 1984. Den dopaminerge innerveringen av den supraoptiske og paraventrikulære kjernen. En lys- og elektronmikroskopisk studie. Brain Res. 323, 65-72. Caldwell, JD, Prange, AJ, Pedersen, CA, 1986. Oksytokin letter seksuell mottakelighet av østrogenbehandlede hunrotter. Neuropeptider 7, 175-189. Cameron, JL, Pomerantz, SM, Layden, LM, Amico, JA, 1992. Dopaminerg stimulering av oksytocinkonsentrasjoner i plasma av hann- og kvinnelige aper med apomorfin og en D2-reseptoragonist. J. Clin. Endocrinol. Metab. 75, 855-860. Canteras, NS, Simerly, RB, Swanson, LW, 1995. Organisering av fremskrivninger fra amygdalens mediale kjerne: en PHAL-studie i rotte. J. Comp. Neurol. 360, 213-245. Carmichael, MS, Humbert, R., Dixen, J., Palmisano, G., Greeleaf, W., Davidson, JM, 1987. Plasmaoksytokin øker i menneskelig seksuell respons. J. Clin. Endocrinol. Metab. 64, 27-31. Carter, CS, 1992. Oksytokin og seksuell oppførsel. Neurosci. Biobehav. Rev 16, 131-144. Carter, CS, Lederhendler, II, Kirkpatrick, B., 1997. Den interaktive neurobiologien av tilknytning, Annals of the New York Academy of Sciences, vol. 807. New York Academy of Sciences, New York. Castelli, MP, Piras, AP, Melis, T., Succu, S., Sanna, F., Melis, MR, Collu, S., Ennas, MG, Diaz, G., Mackie, K., Argiolas, A. , 2007. Cannabinoid CB1-reseptorer i den paraventrikulære kjernen og sentral kontroll av penile ereksjon: immuncytokjemi, autoradiografi og atferdsstudier. Neuroscience 147, 197-206. Chen, KK, Chang, LS, 2003. Effekt av excitatoriske aminosyre-reseptoragonister på penile ereksjon etter administrering i paraventrikulære kjerner av hypothalamus hos rotter. J. Urol. 62, 575-580. Chen, KK, Chan, JYH, Chang, LS, Chen, MT, Chang, SHH, 1992. Utløsning av penile ereksjon etter aktivering av hippocampalformasjonen i rotte. Neurosci. Lett. 141, 218-222. Chen, KK, Chan, JYH, Chang, LS, 1999. Dopaminerg neurotransmisjon ved den paraventrikulære kjernen i hypothalamus i sentral regulering av penile ereksjon i rotte. J. Urol. 162, 237-242. Collins, GT, Truccone, A., Haji-Abdi, F., Newman, AH, Grundt, P., Rice, KC, Mans, SM, Greedy, BM, Enguehard-Gueiffer, C., Gueiffer, A., Chen , J., Wang, S., Katz, JL, Grandy, DK, Sunahara, RK, Woods, JH, 2009. Pro-erektile effekter av dopaminD2-lignende agonister medieres av D3-reseptoren hos rotter og mus. J. Pharmacol. Exp. Ther. 329, 210-217. Coolen, LM, Allard, J., Truitt, WA, McKenna, KE, 2004. Sentral regulering av utløsning. Physiol. Behav. 83, 203-215. Cui, SS, Bowen, RC, Gu, GB, Hannesson, BK, Yu, PH, Zhang, X., 2001. Forebygging av cannabinoidavbruddssyndrom ved litium: involvering av oksytocinerg neuronal aktivering. J. Neurosci. 21, 9867-9876. Dahlstrom, A., Fuxe, K., 1964. Bevis for eksistensen av monoaminholdige nevroner i sentralnervesystemet. I. Demonstrasjon av monoaminer i cellelegemene av hjernestamme-neuroner. Acta Physiol. Scand. 62 (Suppl. 232), 1-54. Depoortère, R., Bardin, L., Rodrigues, M., Abrial, E., Aliaga, M., Newman-Tancredi, A., 2009. Penile ereksjon og gjentakelse indusert av dopamin D2-lignende reseptoragonister hos rotter: påvirkning av belastning og bidrag av dopamin D2, men ikke D3 og D4-reseptorer. Behav. Pharmacol. 20, 303-311. Domes, G., Heinrichs, M., Buchel, C., Braus, DF, Herpertz, SC, 2007. Oksytokin demper amygdala respons på følelsesmessige ansikter uavhengig av valens. Biol. Psykiatri 62, 11871190. Dominguez, J., Riolo, JV, Xu, Z., Hull, ME, 2001. Regulering ved medial amygdala av kopiering og medial preoptisk dopaminfrigivelse. J. Neurosci. 21, 349-355. Donaldson, ZR, Young, LJ, 2009. Oksytocin, vasopressin og neurogenetikk av sosialitet. Vitenskap 322, 900-904. Eaton, RG, Markowski, VF, Lumley, LA, Thompson, JT, Moses, J., Hull, EM, 1991. D2-reseptorer i den paraventrikulære kjernen regulerer kjønnsresponser og kopiering hos hannrotter. Pharmacol. Biochem. Behav. 39, 177-181. Ebner, K., Bosch, OJ, Krömer, SA, Singewald, N., Neumann, ID, 2005. Frigivelse av oksytocin i rotte sentrale amygdala modulerer stress-coping oppførsel og frigjøring av excitatoriske aminosyrer. Neuropsykofarmakologi 30, 223-230. Enguehard-Gueiffier, C., Hübner, H., El Hakmaoui, A., Allouchi, H., Gmeiner, P., Argiolas, A., Melis, MR, Gueiffier, A., 2006. 2 - [(4-fenylpiperazin-1-yl) metyl] imidazo (di) aziner som selektive D4-ligander. Induksjon av penile ereksjon med 2- [4- (2-metoksyfenyl) piperazin-1-ylmetyl] imidazo [1,2-a] pyridin (PIP3EA), en sterk og selektiv D4 agonist. J. Med. Chem. 49, 3938-3947. Everitt, BJ, 1990. Seksuell motivasjon: En neurologisk og atferdsanalyse av mekanismene som ligger til grunn for appetitive og kopulerende responser, mannlige rotter. Neurosci. Biobehav. Rev 14, 217-232. Fibiger, HC, Phillips, AG, 1988. Mesokortikolimbisk dopaminsystem og belønning. Ann. N. Y. Acad. Sci. 5, 206-215. Fransk, SJ, Totterdell, S., 2003. Individuelle nucleus accumbens-projiseringsneuroner mottar både basolaterale amygdala- og ventrale subikulære afferenter hos rotter. Neuroscience 119, 19-31. 954 MR Melis, A. Argiolas / Neurovitenskap og Biobehavioral Anmeldelser 35 (2011) 939-955 Freund-Mercier, MJ, Richard, P., 1981. Spenningsvirkninger av intraventrikulære injeksjoner av oksytocin på melkeutkastningsrefleksen i rotte. Neurosci. Lett. 23, 193-198. Freund-Mercier, MJ, Richard, P., 1984. Elektrofysiologiske bevis for tilretteleggende kontroll av oksytocin-neuroner ved oksytocin under amning i rotte. J. Physiol. (Lond.) 352, 447-466. Freund-Mercier, MJ, Stoeckel, ME, 1995. Somatodendritiske autoreceptorer på oksytocinneuroner. I: Ivell, R., Russel, JA (Eds.), Oksytocin, cellulære og molekylære tilnærminger i medisin og forskning. Adv. Exp. Med. Biol., 365. Plenum Press, New York og London, pp. 185-194. Freund-Mercier, MJ, Stoeckel, ME, Palacios, JM, Pazos, JM, Richard, PH, Porte, A., 1987. Farmakologiske egenskaper og anatomisk fordeling av 3H-oksytocinbindingssteder i Wistar-rottehjerne studert ved autoradiografi. Neuroscience 20, 599-614. Giuliano, F., Rampin, O., 2000. Sentral kontroll av penis ereksjon. Neurosci. Biobehav. Rev 24, 517-533. Giuliano, F., Allard, J., 2001. Dopamin og seksuell funksjon. Int. J. Impotens Res. 13 (Suppl. 3), 18-28. Giuliano, F., Rampin, O., 2004. Neural kontroll av ereksjon. Physiol. Behav. 83, 189-201. Giuliano, F., Bernabè, J., McKenna, KE, Longueville, F., Rampin, O., 2001. Spinal proerektil effekt av oksytocin i bedøvede rotter. Am J. Physiol. Regul. Integ. Comp. Physiol. 280, R1870-R1877. Goto, Y., Grace, AA, 2005. Dopaminerg modulering av limbisk og kortikal kjøring av kjernen accumbens i målrettet oppførsel. Nat. Neurosci. 8, 805-812. Hawthorn, J., Ang, VT, Jenkins, JS, 1985. Effekter av lesjoner i hypotalamiske paraventrikulære, supraoptiske og suprachiasmatiske kjerner på vasopressin og oksytocin i rottehjerne og ryggmargen. Brain Res. 346, 51-57. Heier, RF, Dolak, LA, Duncan, JN, Hyslop, DK, Lipton, MF, Martin, LJ, Mauragis, MA, Piercey, MF, Nichols, NF, Schreur, PJ, Smith, MW, Mån, MW, 1997. Syntese og biologiske aktiviteter av (R) -5,6-dihydro-N, N-dimetyl-4H-imidazo [4,5,1-ij] kinolin-5-amin) og dets metabolitter. J. Med. Chem. 40, 639-646. Hsieh, GC, Hollingsworth, PR, Martino, B., Chang, R., Terranova, MA, O'Neill, AB, Lynch, JJ, Moreland, RB, Donnelly-Roberts, DL, Kolasa, T., Mikusa, JP , McVey, JM, Marsh, KC, Sullivan, JP, Brioni, JD, 2004. Sentrale mekanismer som regulerer penile ereksjon i bevisste rotter: de dopaminerge systemene relaterer seg til apomorfinets proerektile effekt. J. Pharmacol. Exp. Ther. 308, 330-338. Huang, PL, Dawson, TM, Bredt, DS, Snyder, SH, Fishman, MC, 1993. Målrettet forstyrrelse av neuronalt nitrogenoksydsyntase-genet. Cell 75, 1273-1286. Huber, D., Veinante, P., Stoop, R., 2005. Vasopressin og oksytocin excite tydelige nevronpopulasjoner i den sentrale amygdalaen. Vitenskap 308, 245-248. Hull, EM, Warner, RK, Bazzett, TJ, Eaton, RC, Thompson, JT, 1989. D2 / D1-forholdet i det mediale preoptiske området påvirker kopiering av hannrotter. J. Pharmacol. Exp. Ther. 251, 422-427. Hull, EM, Du, J., Lorrain, DS, Matuszewich, L., 1995. Ekstracellulær dopamin i det mediale preoptiske området: implikasjoner for seksuell motivasjon og hormonell kontroll av kopiering. J. Neurosci. 15, 7465-7471. Hull, EM, Meisel, RL, Sachs, BD, 2002. Mannlig seksuell oppførsel. I: Pfaff, DW, Arnold, AP, Etgen, AM, Fahrbach, SE, Rubin, RT (Eds.), Hormoner, hjerne og adferd. Academic Press, New York, s. 3-137. Hurlemann, R., Patin, A., Onur, OA, Cohen, MX, Baumgartner, T., Metzler, S., Dziobek, I., Gallinat, J., Wagner, M., Maier, W., Kendrick, KM, 2010. Oksytokin øker amygdala-avhengig, sosialt forsterket læring og emosjonell empati hos mennesker. J. Neurosci. 30, 4999-5007. Ivell, R., Russel, JA, 1995. Oksytokin: Cellulære og molekylære tilnærminger i medisin og forskning. Fremskritt i eksperimentell medisin og biologi, vol. 395. Plenum Press, New York. Kelley, AE, Domesick, VB, 1982. Fordelingen av projeksjonen fra hippocampalformasjonen til kjernen accumbens i rotte: en anterograde- og retrograd pepperrotperoxidase-studie. Neuroscience 7, 2321-2335. Kimura, Y., Naitou, Y., Wanibuchi, F., Yamaguchi, T., 2008. 5-HT (2C) reseptor aktivering er en vanlig mekanisme for prooperativ effekt av apomorfin, oksytocin og melanotan-II hos rotter. E. J. Pharmacol. 589, 157-162. Kondo, Y., Sachs, BD, Sakuma, Y., 1998. Betydningen av medial amygdala i rottestifting er fremkallet av eksterne stimuli fra østrolige kvinner. Behav. Brain Res. 91, 215-222. Kovacs, GL, Sarnyai, Z., Szabo, G., 1998. Oksytokin og avhengighet: en anmeldelse. Psychoneuroendocrinology 23, 945-962. Lee, HJ, Macbeth, AH, Pagani, JH, Scott Young 3rd, W., 2009. Oksytocin: den store tilrettelegger for livet. Prog. Neurobiol. 88, 127-151. Lindvall, O., Bjorklund, A., Skagerberg, G., 1984. Selektiv istokjemisk demonstrasjon av dopamin-terminalsystemer i rotte di- og telencefalon: nytt bevis for dopaminerge innervering av hypotalamus-neurosekretoriske kjerne. Brain Res. 306, 19-30. Liu, YC, Salamon, JD, Sachs, BD, 1997. Forringet seksuell respons etter lesjoner av den paraventrikulære kjernen i hypothalamus hos hannrotter. Behav. Neurosci. 111, 1361-1367. Löber, S., Tschammer, N., Hübner, H., Melis, MR, Argiolas, A., Gmeiner, P., 2009. Azulene-rammen som en ny bioisostere: utforming av potente dopamin D4-reseptorligander som inducerer penile ereksjon. Chem. Med. Chem. 4, 325-328. McCleskey, EW, Fox, AP, Feldman, DH, Cruz, LJ, Olivera, BM, Tsien, RW, Yoshikami, D., 1987. _ -Konotoxin: direkte og vedvarende blokkering av bestemte typer kalsiumkanaler i nevroner, men ikke muskler. Prot. Nat. Acad. Sci. USA 84, 4327-4331. McKenna, KE, 2000. Noen forslag om organisering av sentralnervesystemet kontroll av penile ereksjon. Neurosci. Biobehav. Rev 24, 535-540. Marson, L., McKenna, KE, 1992. En rolle for 5-hydroksytryptamin i fallende inhibering av spinale seksuelle reflekser. Exp. Brain Res. 88, 313-318. Marson, L., McKenna, KE, 1996. CNS-cellegrupper som er involvert i kontrollen av ischiocavernosus- og bulbospongiosusmusklene: en transneuronal sporingstest ved bruk av pseudorabies-virus. J. Comp. Neurol. 374, 161-179. Meisel, RL, Sachs, BD, 1994. Fysiologi av mannlig seksuell oppførsel. I: Knobil, E., Neil, J. (Eds.), Reproduksjonens Fysiologi, vol. 2, andre utgave. Raven Press, New York, s. 3-96. Melin, P., Kihlstrom, JE, 1963. Påvirkning av oksytocin på seksuell oppførsel hos mannlige kaniner. Endokrinologi 73, 433-435. Melis, MR, Argiolas, A., 1995a. Dopamin og seksuell oppførsel. Neurosci. Biobehav. Rev 19, 19-38. Melis, MR, Argiolas, A., 1995b. Nitrogenoksyddonorer induserer penis ereksjon og gis når de injiseres i sentralnervesystemet hos hannrotter. E. J. Pharmacol. 294, 1-9. Melis, MR, Argiolas, A., 2003. Sentral oksytokinerg neurotransmisjon: Et stoffmål for terapi av psykogen erektil dysfunksjon. Curr. Narkotikamål 4, 55-66. Melis, MR, Argiolas, A., Gessa, GL, 1986. Oksytokininducert gjevning og penis ereksjon: Virkningssted i hjernen. Brain Res. 398, 259-265. Melis, MR, Argiolas, A., Gessa, GL, 1987. Apomorfin-indusert gjentakelse og penis ereksjon: virkningssted i hjernen. Brain Res. 415, 98-104. Melis, MR, Argiolas, A., Gessa, GL, 1989a. Apomorfin øker plasmaoksytokinnivået hos rotter. Neurosci. Lett. 98, 351-355. Melis, MR, Argiolas, A., Gessa, GL, 1989b. Bevis for at apomorfin fremkaller penis ereksjon og gjengivelse ved å frigjøre oksytocin i sentralnervesystemet. E. J. Pharmacol. 164, 565-570. Melis, MR, Argiolas, A., Stancampiano, R., Gessa, GL, 1990. Effekt av apomorfin på oksytocinkonsentrasjoner i forskjellige hjerneområder og plasma av hannrotter. E. J. Pharmacol. 182, 101-107. Melis, MR, Mauri, A., Argiolas, A., 1994a. Apomorfin- og oksytocin-indusert penis ereksjon og gjengjøring i intakte og kastrerte hannrotter: effekt av seksuelle steroider. Neuroendokrinologi 59, 349-354. Melis, MR, Stancampiano, R., Argiolas, A., 1994b. Penile ereksjon og gjengning indusert av paraventrikulære NMDA injeksjoner medieres av oksytocin. Pharmacol. Biochem. Behav. 48, 203-207. Melis, MR, Stancampiano, R., Argiolas, A., 1994c. Forebygging av NG-nitro-l-argininmetylester av apomorfin- og oksytocininducert penis ereksjon og gjengning: virkningssted i hjernen. Pharmacol. Biochem. Behav. 48, 799-804. Melis, MR, Succu, S., Argiolas, A., 1996. Dopaminagonister øker produksjonen av nitrogenoksid i den paraventrikulære kjernen i hypothalamus: korrelasjon med penis ereksjon og gjengning. E. J. Neurosci. 8, 2056-2063. Melis, MR, Succu, S., Iannucci, U., Argiolas, A., 1997. Oksytokin øker produksjonen av nitrogenoksid i den paraventrikulære kjernen i hypothalamus: korrelasjon med penis ereksjon og gjengning. Reg. Peptider 69, 105-112. Melis, MR, Succu, S., Mauri, A., Argiolas, A., 1998. Nitrogenoksydproduksjonen økes i den paraventrikulære kjernen til hypothalamus hos hannrotter under ikke-kontakt penile ereksjoner og kopiering. E. J. Neurosci. 10, 1968-1974. Melis, MR, Spano, MS, Succu, S., Argiolas, A., 1999a. Oksytocinantagonisten d (CH2) 5Tyr (Me) 2-Orn8-vasotocin reduserer ikke-berørte penile ereksjoner hos hannrotter. Neurosci. Lett. 265, 171-174. Melis, MR, Succu, S., Spano, MS, Argiolas, A., 1999b. Morfin injisert i den paraventrikulære kjernen i hypothalamus forhindrer ikke-kontakt ereksjoner og vanskeliggjør kopiering: involvering av nitrogenoksid. E. J. Neurosci. 11, 1857-1864. Melis, MR, Spano, MS, Succu, S., Argiolas, A., 2000. Effekt av eksitatoriske aminosyre-, dopamin- og oksytocinreceptorantagonister på ikke-kontaktpenneleksjoner og paraventrikulær nitrogenoksydproduksjon hos hannrotter. Behav. Neurosci. 114, 849-857. Melis, MR, Succu, S., Mascia, MS, Cortis, L., Argiolas, A., 2003. Ekstracellulær dopamin øker i den paraventrikulære kjernen hos hannrotter under seksuell aktivitet. E. J. Neurosci. 17, 1266-1272. Melis, MR, Succu, S., Mascia, MS, Argiolas, A., 2004a. Antagonisme av cannabinoide CB1-reseptorer i den paraventrikulære kjernen av hannrotter induserer penile ereksjon. Neurosci. Lett. 359, 17-20. Melis, MR, Succu, S., Mascia, MS, Cortis, L., Argiolas, A., 2004b. Ekstracellulære excitatoriske aminosyrer øker i den paraventrikulære kjernen hos hannrotter under seksuell aktivitet: Hovedrollen avNMDA-receptorene i erektilfunksjonen. E. J. Neurosci. 19, 2569-2575. Melis, MR, Succu, S., Mascia, MS, Argiolas, A., 2005. PD-168,077, en selektiv dopamin D4-reseptoragonist, induserer penile ereksjon når den injiseres i den paraventrikulære kjernen av hannrotter. Neurosci. Lett. 379, 59-62. Melis, MR, Succu, S., Mascia, MS, Sanna, F., Melis, T., Succu, S., Castelli, MP, Argiolas, A., 2006a. SR 141716A-indusert penis ereksjon hos hannrotter: involvering av paraventrikulær glutaminsyre og nitrogenoksyd. Neurofarmakologi 50, 219-228. Melis, M., Succu, S., Sanna, F., Mascia, MS, Melis, T., Enguehard-Gueiffier, C., Hubner, H., Gmenier, P., Gueiffier, A., Argiolas, A., 2006b. PIP3EA og PD168077, to selektive dopamin D4 reseptoragonister, induserer penile ereksjon hos hannrotter: sted og virkningsmekanisme i hjernen. E. J. Neurosci. 24, 2021-2030. Melis, MR, Melis, T., Cocco, C., Succu, S., Sanna, F., Pillolla, G., Boi, A., Ferri, GL, Argiolas, A., 2007. Oksytokin injisert i det ventrale tegmentale området inducerer penile ereksjon og øker ekstracellulær dopamin i nucleus accumbens MR Melis, A. Argiolas / Neurovitenskap og Biobehavioral Anmeldelser 35 (2011) 939-955 955 og paraventrikulær kjernen av hypothalamus av hannrotter. E. J. Neurosci. 26, 1026-1035. Melis, MR, Sanna, F., Succu, S., Zarone, P., Boi, A., Argiolas, A., 2009a. Rollen av oxytocin i de foregående og forbruksfasene av mannlig rotte seksuell oppførsel. I: Jastrow, H., Feuerbach, D. (Red.), Håndbok for oksytokinforskning: Syntese, lagring og frigjøring, tiltak og legemiddelformer. Nova Publishers Inc, New York, USA, s. 109-125. Melis, MR, Succu, S., Sanna, F., Boi, A., Argiolas, A., 2009b. Oksytokin injisert i det ventrale subikulumet eller den posteramediale kortikale kjernen i amygdalaen fremkaller penile ereksjon og øker ekstracellulær dopamin i nukleinsammenhengene av hannrotter. E. J. Neurosci. 30, 1349-1357. Melis, MR, Succu, S., Cocco, C., Caboni, E., Sanna, F., Boi, A., Ferri, GL, Argiolas, A., 2010. Oksytokin induserer penile ereksjon når det injiseres i ventral subikulum: nitrogenoksyd og glutaminsyre. Neurofarmakologi 58, 1153-1160. Moreland, RB, Nakane, M., Donnelly-Roberts, DL, Miller, LN, Chang, R., Uchic, ME, Terranova, MA, Gubbins, EJ, Helfrich, RJ, Namovic, MT, El-Kouhen, OF, Masters, JN, Brioni, JD, 2004. Sammenligningsfarmakologi av human dopamin D (2) -lignende reseptorstabile cellelinjer koblet til kalsiumfluss gjennom Galpha (qo5). Biochem. Pharmacol. 68, 761-772. Moos, F., Freund-Mercier, MJ, Guerne, Y., Guerne, JM, Stoeckel, ME, Richard, P., 1984. Frigivelse av oksytocin og vasopressin med magnocellulære kjerner in vitro: spesifikk tilretteleggende effekt av oksytocin på egen utgivelse. J. Endocrinol. 102, 63-72. Murphy, MR, Seckl, JR, Burton, S., Checkley, SA, Lightman, SL, 1987. Endringer i oksytocin og vasopressinsekresjon under seksuell aktivitet hos menn. J. Clin. Endocrinol. Metab. 65, 738-741. Nishimori, K., Young, LJ, Guo, Q., Wang, Z., Insel, TR, Matzuk, MM, 1996. Oksytokin er nødvendig for pleie, men ikke nødvendig for fødsel eller reproduksjonsadferd. Proc. Natl. Acad. Sci. USA 93, 11699-11704. Patel, S., Freedman, S., Chapman, KL, Emms, F., Fletcher, AE, Knowles, M., Marwood, R., McCallister, G., Myers, J., Curtis, J., Kulagowski, JJ, Leeson, PD, Ridgill, M., Graham, M., Matheson, S., Rathbone, D., Watt, AP, Bristow, LJ, Rupniak, NM, Baskin, E., Lynch, JJ, Ragan, Cl , 1997. Biologisk profil av L 745,870, en selektiv antagonist med høy affinitet for dopamin D4 reseptoren. J. Pharmacol. Exp. Ther. 283, 636-647. Pedersen, CA, Caldwell, JD, Jirikowski, GF, Insel, TR, 1992. Oksytocin i morselskap, seksuell og sosial adferd, Annals of the New York Academy of Sciences, vol. 652. New York Academy of Sciences, New York. Petrovic, P., Kalisch, R., Sanger, T., Dolan, RJ, 2008. Oksytokin demper effektive evalueringer av kondisjonerte ansikter og amygdala-aktivitet. J. Neurosci. 28, 6607-6615. Pfaus, JG, Everitt, BJ, 1995. Psykofarmakologi av seksuell oppførsel. I: Knobil, FE, Kupfer, DJ (Eds.), Psychopharmacology: Den fjerde generasjonen av fremgang. Raven Press, New York, s. 742-758. Rajfer, J., Aronson, WJ, Bush, PA, Dorey, FJ, Ignarro, LJ, 1992. Nitrogenoksyd som mediator for avslapning av corpus cavernosum som respons på nonadrenerge, ikke-kolinerge nevrotransmisjoner. N. Engl. J. Med. 326, 90-94. Roeling, TAP, Van Erp, AMM, Meelis, W., Kruk, MR, Veening, JG, 1991. Behandlingseffekter av NMDA injisert i rottehypotalamiske paraventrikulære kjerner. Brain Res. 550, 220-224. Sachs, BD, 1997. Erection fremkalt hos hannrotter med luftbåren duft fra østrolige kvinner. Physiol. Behav. 62, 921-924. Sachs, BD, 2000. Kontekstuelle tilnærminger til fysiologi og klassifisering av erektil funksjon, erektil dysfunksjon og seksuell opphisselse. Neurosci. Biobehav. Rev 24, 541-560. Sachs, BD, 2007. En kontekstuell definisjon av mannlig seksuell opphisselse. Horm. Behav. 51, 569-578. Sanchez, F., Alonso, JR, Arevalo, R., Blanco, E., Aijon, J., Vazquez, R., 1994. Sameksistens av NADPH-diaphorase med vasopressin og oksytocin i de rottehypothalamiske magnocellulære neurosekretoriske kjernene. Cell Vev Res. 276, 31-34. Sanna, F., Succu, S., Boi, A., Melis, MR, Argiolas, A., 2009. Fosfodiesterase type 5-hemmere lette ikke-kontakt ereksjoner hos hannrotter: virkningssted i hjernen og virkningsmekanisme. J. Kjønn. Med. 6, 2680-2689. Saphier, D., Feldman, S., 1987. Effekter av septal og hippocampale stimuli på paraventrikulære nuklearneuroner. Neuroscience 20, 749-755. Sato-Suzuki, I., Kita, I., Oguri, M., Arita, H., 1998. Stereotypte gabende responser indusert ved elektrisk og kjemisk stimulering av paraventrikulære kjerner av rotten. J. Neurophysiol. 80, 2765-2775. Schuman, EM, Madison, DV, 1994. Nitrogenoksyd og synaptisk funksjon. Ann. Rev Neurosci. 17, 153-183. Snyder, SH, 1992. Nitrogenoksyd: først i en ny klasse av nevrotransmittere? Vitenskap 254, 494-496. Sofroniew, MV, 1983. Vasopressin og oksytocin i pattedyrens hjerne og ryggmargen. Trender Neurosci. 6, 467-472. Sokoloff, P., Schwartz, JC, 1995. Nye dopaminreseptorer et halvt tiår senere. Trender Pharmacol. Sci. 16, 270-275. Southam, E., Garthwaite, J., 1993. Den nitrogenoksid-cykliske GMP-signalveien i rottehjerne. Neurofarmakologi 32, 1267-1277. Stancampiano, R., Melis, MR, Argiolas, A., 1994. Penile ereksjon og gjengning indusert av 5-HT1c agonister hos hannrotter: forhold til dopaminerg og oksytocinerg overføring. E. J. Pharmacol. 261, 149-155. Succu, S., Mascia, MS, Sanna, F., Melis, T., Argiolas, A., Melis, MR, 2006. Cannabinoid CB1-reseptorantagonisten SR 141716A inducerer penile ereksjon ved å øke ekstracellulær glutaminsyre i den paraventrikulære kjernen hos hannrotter. Behav. Brain Res. 169, 274-281. Succu, S., Sanna, F., Melis, T., Boi, A., Argiolas, A., Melis, MR, 2007. Stimulering av dopaminreseptorer i den paraventrikulære kjernen i hypothalamus av hannrotter induserer penile ereksjon og øker ekstracellulær dopamin i kjernen accumbens: involvering av sentraloksytocin. Neurofarmakologi 52, 1034-1043. Succu, S., Sanna, F., Cocco, C., Melis, T., Boi, A., Ferri, GL, Argiolas, A., Melis, MR, 2008. Oksytokin induserer penile ereksjon når det injiseres i det ventrale tegmentale området av hannrotter: nitrogenoksyd og syklisk GMP-rolle. E. J. Neurosci. 28, 813-821. Tanda, G., Pontieri, FE, Di Chiara, G., 1997. Cannabinoider og heroinaktivering av mesolimbisk dopamintransmisjon med en felles mu1 opioidreceptormekanisme. Vitenskap 276, 2048-2050. Tang, Y., Rampin, O., Calas, A., Facchinetti, P., Giuliano, F., 1998. Oksytokinerg og serotoninergisk innervering av identifiserte lumbosakrale kjerner som kontrollerer penile ereksjon i hannrotten. Neuroscience 82, 241-254. Theodosis, DT, 1985. Oksytocin-immunoreaktive terminaler synaps på oksytocin-neuroner i de supraoptiske kjernene. Nature (London) 313, 682-684. Tindall, JS, 1974. Stimuli som forårsaker frigjøring av oksytocin. I: Geiger, SR, Knobil, E., Sawyer, WH, Greef, R., Astwood, EB (Eds.), Handbook of Physiology. Sekt. 7, Endocrinology, vol. IV. American Physiology Society, Washington DC, s. 257-267. Torres, G., Lee, S., Rivier, C., 1993. Ontogeny av rottehypothalamisk nitrogenoksydsyntase og kolokalisering med neuropeptider. Mol. Celle. Neurosci. 4, 155-163. Uhl-Bronner, S., Waltisperger, E., Martinez-Lorenzana, G., Condes, LM, Freund-Mercier, MJ, 2005. Seksuelt dimorf uttrykk av oksytocinbindingssteder i forreng og ryggrad av rotter. Neuroscience 135, 147-154. Vaccari, C., Lolait, SJ, Ostrowski, NL, 1998. Sammenlikning av distribusjon av vasopressin V1b og oksytocinreceptor messenger ribonukleinsyrer i hjernen. Endokrinologi 139, 5015-5033. Van Den Pol, A., 1991. Glutamat og aspartatimmunoreaktivitet i hypotalamiske presynaptiske axoner. J. Neurosci. 11, 2087-2101. Veronneau-Longueville, F., Rampin, O., Freund-Mercier, MJ, Tang, Y., Calas, A., Marson, L., McKenna, KE, Stoeckel, ME, Benoit, G., Giuliano, F. , 1999. Oksytokinerg innervering av autonome kjerne som styrer penis ereksjon i rotte. Neuroscience 93, 1437-1447. Vincent, SR, Kimura, H., 1992. Histokjemisk kartlegging av nitrogenoksydsyntase i rottehjernen. Neuroscience 46, 755-784. Wagner, CK, Clemens, LG, 1993. Neurofysin-holdig vei fra den paraventrikulære kjernen til hypothalamus til en seksuelt dimorf motorkjerne i lumbale ryggmargen. J. Comp. Neurol. 336, 106-116. Winslow, JT, Insel, TR, 1991. Sosial status i par av mannlige ekornes aper bestemmer adferdsresponsen mot sentral oksytocinadministrasjon. J. Neurosci. 11, 2032-2038. Wise, RA, Rompre, P.-P., 1989. Hjernedopin og belønning. Ann. Rev Psychol. 40, 191-225. Witt, DM, Insel, TR, 1994. Mannlig seksuell oppførsel aktiverer c-fos-lignende protein i oksytocinneuroner i den paraventrikulære kjernen i hypothalamus. J. Neuroendocrinol. 6, 13-18. Witter, MP, 2006. Forbindelser av rotteens subikulum: topografi i forhold til kolonne og laminar organisasjon. Behav Brain Res. 174, 251-264. Woodruff, GN, Foster, AC, Gill, R., Kemp, JA, Wong, EH, Iversen, LL, 1987. Samspillet mellom MK-801 og reseptorer for N-metyl-d-aspartat: funksjonelle konsekvenser. Neurofarmakologi 26, 903-909. Yamashita, H., Shigeru, O., Inenaga, K., Kasai, M., Uesugi, S., Kannan, H., Kaneko, T., 1987. Oksytocin exciterer overveiende formodede oxytocinneuroner i den supraoptiske kjernen i rotte in vitro. Brain Res. 416, 364-368. Yells, DP, Hendricks, SE, Prendergast, MA, 1992. Lesjoner av kjernen paragigantocellularis: effekter på parringsoppførsel hos hannrotter. Brain Res. 596, 73-79. Young, WS, Shepard, E., Amico, J., Hennighausen, L., LaMarca, ME, McKinney, C., Ginns, EI, 1996. Mangel på mus oksytokin forhindrer utstødning av melk, men ikke fruktbarhet eller fødsel. J. Neuroendocrinol. 8, 847-854. Zahran, AR, Vachon, P., Courtois, F., Carrier, S., 2000. Økninger i intracavernøst peniltrykk etter injeksjoner av eksitatoriske aminosyre-reseptoragonister i den hypotalamiske paraventrikulære kjernen hos bedøvede rotter. J. Urol. 164, 1793-1797.