UWAGI YBOP: Efekt Coolidge kryje się za potęgą internetowej pornografii. Efekt Coolidge'a jest zjawiskiem obserwowanym u gatunków ssaków, w którym samce (iw mniejszym stopniu samice) wykazują nowe zainteresowanie seksualne, jeśli zostaną wprowadzone do nowych wrażliwych partnerów seksualnych, nawet po odmowie seksu wcześniejszym, ale wciąż dostępnym partnerom seksualnym. Nowość seksualna zastępuje to przyzwyczajenie nowym podnieceniem wywołanym przez wyższą dopaminę. Ciągły strumień nowości sprawia, że pornografia internetowa tak bardzo różni się od pornografii z przeszłości.
Oryginalny artykuł z wykresami
- Dennisa F. Fiorino,
- Ariane Coury i
- Anthony G. Phillips
-
The Journal of Neuroscience, 15 czerwca 1997 r., 17 (12): 4849–4855;
Abstrakcja
Efekt Coolidge'a opisuje ponowne zainicjowanie zachowań seksualnych u zwierzęcia "seksualnie sytego" w odpowiedzi na nowe wrażliwe partnerstwo. Biorąc pod uwagę rolę mezolimbicznego układu dopaminowego (DA) w inicjacji i utrzymywaniu motywowanych zachowań, zastosowano mikrodializę do monitorowania transmisji DA jądra półleżącego (NAC) podczas kopulacji, sytości seksualnej i ponownego wznowienia zachowań seksualnych. Zgodnie z wcześniejszymi doniesieniami, prezentacja żeńskiej kobiety za ekranem i kopulacja były związane ze znacznym wzrostem wypływu DA NAC. Powrót stężeń NAC DA do wartości wyjściowych zbiegł się z okresem sytości seksualnej, chociaż stężenia metabolitów DA, kwasu dihydroksyfenylooctowego i kwasu homowanilinowego pozostały podwyższone. Prezentacja nowej receptywnej samicy za ekranem skutkowała niewielkim wzrostem DA NAC, który znacznie wzrósł podczas odnowienia kopulacji z nową samicą. Obecne dane sugerują, że właściwości bodźca nowej receptywnej samicy mogą służyć do zwiększenia transmisji NAC DA u seksualnie nasyconego samca szczura, a to z kolei może być związane z ponownym przywróceniem zachowań seksualnych.
Wprowadzenie
Samiec szczura, który kopulował do sytości, może zostać ponownie sprowokowany do kopulacji, jeśli pierwotna samica zostanie zastąpiona nową, podatną samicą. Zjawisko to nazwano efektem Coolidge'a i zaobserwowano u wielu gatunków ssaków ( Wilson i in., 1963 ). Czynniki ogólne, takie jak zmęczenie czy depresja motoryczna, nie wystarczają do wyjaśnienia pozornego stanu nasycenia seksualnego, ponieważ bodźce pochodzące od nowej samicy nadal mogą wywołać kopulację. Sytość seksualną można również w znacznym stopniu „odwrócić” farmakologicznie, podając różnorodne leki, które mogą oddziaływać na różne układy neuroprzekaźnikowe. Do leków tych zaliczają się johimbina, 8-OH-DPAT ( Rodriguez-Manzo i Fernandez-Guasti, 1994 , 1995a ), nalakson ( Pfaus i Gorzalka, 1987 ; Rodriguez-Manzo i Fernandez-Guasti, 1995a , b ) i apomorfina ( Mas i in., 1995c ). Chociaż nie można wykluczyć działania obwodowego tych leków (np. adrenergicznych efektów na funkcję erekcji), na podstawie selektywnych eksperymentów z centralnymi uszkodzeniami noradrenergicznymi ( Rodriguez-Manzo i Fernandez-Guasti, 1995a ) i eksperymentów mikrodializy, które monitorowały metabolizm dopaminergiczny w przyśrodkowym obszarze przedwzrokowym ( Mas i in., 1995a , b ) , zaproponowano wpływ na centralne mechanizmy leżące u podstaw sytości seksualnej.
Biorąc pod uwagę, że mechanizmy centralne mogą pośredniczyć w ponownym zainicjowaniu zachowań seksualnych charakterystycznych dla efektu Coolidge'a, prawdopodobnym kandydatem jest układ dopaminy mezolimbicznej (DA), rzutujący z brzusznego obszaru nakrywki do NAC. Wydaje się, że układ dopaminy mezolimbicznej działa jako główny modulator w złożonych procesach integracyjnych, które obejmują ocenę bodźców środowiskowych, takich jak sygnały od seksualnie receptywnej samicy, oraz organizację zachowań ukierunkowanych na cel, w tym kopulację ( Fibiger i Phillips, 1986 ; Blackburn i in., 1992 ; Phillips i in., 1992 ; LeMoal, 1995 ; Salamone, 1996 ).
Chociaż neurony DA śródmózgowia reagują na pierwotne nagrody i sygnały przewidujące nagrodę, nowe lub nieprzewidywalne bodźce środowiskowe wywołują aktywację neuronalną najsilniej w trakcie powtarzanych sesji treningowych ( Fabre i in., 1983 ; Schultz, 1992 ; Mirenowicz i Schultz, 1994 ). Istnieje wiele dowodów potwierdzających ważną rolę wspomagającą mezolimbicznej DA w inicjacji i utrzymaniu zachowań seksualnych szczurów ( Pfaus i Everitt, 1995 ), a szereg badań mikrodializacyjnych donosi o wzroście odpływu NAC DA w fazach apetytywnej i konsumpcyjnej zachowań seksualnych samców ( Pfaus i in., 1990 ; Pleim i in., 1990; Damsma i in., 1992 ; Wenkstern i in., 1993 ; Fumero i in., 1994 ; Mas i in., 1995b ). Istnieje jednak stosunkowo niewiele danych na temat neurochemicznych korelatów nasycenia seksualnego i ponownego zainicjowania zachowań seksualnych. Zastosowanie mikrodializy in vivo do monitorowania neurotransmisji mezolimbicznej DA podczas efektu Coolidge'a stwarza wyjątkową okazję do zbadania roli NAC DA w kopulacji, nasyceniu seksualnym i ponownym rozpoczęciu kopulacji.
Przeprowadzono eksperyment mikrodializacyjny w celu określenia: (1), czy początku poczucia seksualnego towarzyszy powrót pozakomórkowych stężeń DA w NAC do wartości przedwzrostowych lub poniżej, oraz (2), czy przywrócenie zachowania kopulacyjnego w " seksualnie nasycony samiec szczura z nową, receptywną samicą jest skorelowany ze wzrostem wypływu DA NAC.
MATERIAŁY I METODY
Badani. Samce szczurów rasy Sprague Dawley, pozyskane z Animal Care Centre (na Uniwersytecie Kolumbii Brytyjskiej), oraz samice szczurów rasy Long–Evans, pozyskane z Charles River Canada (St. Constant, Quebec, Kanada), były przetrzymywane w klatkach z siatki drucianej (o wymiarach 18 × 25 × 65 cm; po pięć na klatkę) w oddzielnych pomieszczeniach kolonijnych. W pomieszczeniach kolonijnych utrzymywano temperaturę około 20°C w odwróconym 12-godzinnym cyklu światło/ciemność. Szczury miały nieograniczony dostęp do pożywienia (Purina Rat Chow) i wody.
Zabieg chirurgiczny i badania behawioralne przed mikrodializą mózgu. Samice szczurów poddano obustronnej owariektomii w znieczuleniu gazowym halotanem (Fluothane, Ayerst Laboratories) co najmniej 4 tygodnie przed badaniem. Receptywność seksualną u samic poddanych bodźcowi indukowano podskórnymi wstrzyknięciami benzoesanu estradiolu (10 μg) i progesteronu (500 μg), odpowiednio 48 i 4 godziny przed każdą sesją testową. Samce szczurów badano pod kątem zachowań seksualnych dwukrotnie, w odstępie 4 dni, w komorach pleksiglasowych (35 × 35 × 40 cm) z podłogą z siatki drucianej. Tylko samcom szczurów, które osiągnęły kryterium wydajności, obejmujące intromisję w ciągu 5 minut od prezentacji samicy i ejakulację w ciągu 15 minut od pierwszej intromisji, podczas dwóch testów przesiewowych wszczepiono kaniule prowadzące sondę do mikrodializy.
Samce szczurów ( n = 5) znieczulono chlorowodorkiem ketaminy (100 mg/kg, ip) i ksylazyną (10 mg/kg, ip) przed zabiegiem stereotaktycznym. Kaniule prowadzące sondę mikrodializacyjną (19 G) wszczepiono obustronnie nad NAC (współrzędne od bregmy: przednie, +1.7 mm; przyśrodkowe, ± 1.1 mm; brzuszne, -1.0 mm; płaska czaszka) i przymocowano je do czaszki za pomocą akrylu dentystycznego i śrub jubilerskich. Obustronne implanty kaniuli prowadzących zastosowano w celu maksymalizacji szansy na udane eksperymenty z mikrodializą. Na szczęście w niniejszym eksperymencie potrzebna była tylko jedna kaniula dla każdego szczura. Samce szczurów trzymano pojedynczo w dużych plastikowych klatkach z ściółką z kolb kukurydzy przez resztę eksperymentu. Tydzień po zabiegu szczury testowano pod kątem zachowań seksualnych. Podczas tej części treningu komora testowa została wyposażona w przesuwny ekran z pleksiglasu, który dzielił komorę na dużą i małą komorę. Samce szczurów wprowadzano do dużej komory, a po 15 minutach umieszczano za ekranem samicę. Po 15 minutach okresu przygotowawczego ekran usuwano i szczurom pozwolono kopulować przez 30 minut. Przeprowadzono trzy sesje treningowe, jedną co 4 dni. Wszystkie szczury osiągnęły kryterium wydajności podczas każdej sesji.
Eksperyment z efektem Coolidge'a. Szczurom wszczepiano jednostronnie sondy do mikrodializy 12–18 godzin przed eksperymentem z efektem Coolidge'a i umieszczano je w dużej komorze komory testowej z wolnym dostępem do pożywienia i wody. Rano w dniu eksperymentu próbki do mikrodializy pobierano co 15 minut. Eksperyment składał się z następujących siedmiu następujących po sobie faz: (1) faza podstawowa (co najmniej 60 min); (2) samica 1 za ekranem (15 min); (3) kopulacja z samicą 1 do momentu upłynięcia 30-minutowego okresu bez kopulacji; (4) ponowne wprowadzenie samicy 1 za ekranem (15 min); (5) dostęp do samicy 1 przez 15 minut pod warunkiem, że nie doszło do kopulacji (jeśli kopulacja wystąpiła, faza ta była traktowana jako faza 3); (6) wprowadzenie samicy 2 za ekranem (15 min); 7) kopulacja z samicą 2 przez 60 min.
Zachowanie filmowano przy słabym oświetleniu za pomocą systemu wideo JVC i obserwowano na monitorze wideo umieszczonym na zewnątrz pomieszczenia testowego. Standardowe pomiary zachowań seksualnych rejestrowano za pomocą komputera i odpowiedniego oprogramowania ( Holmes i in., 1987 ).
Po eksperymencie mikrodializacyjnym zwierzętom podano przedawkowanie wodzianu chloralu i perfundowano dosercowo za pomocą soli fizjologicznej i formaliny (4%). Mózgi zostały pocięte na plasterki i zamrożone, a następnie przekroje wieńcowe wybarwiono fioletem krezolowym w celu określenia położenia sond do mikrodializy. Tylko szczury z umieszczonymi sondami w NAC były używane do analiz behawioralnych i neurochemicznych.
Mikrodializa i detekcja elektrochemiczna HPLC. Sondy do mikrodializy miały konstrukcję koncentryczną z półprzepuszczalną membraną z włókien pustych (2 mm odsłoniętej membrany, 340 μm średnicy zewnętrznej, granica masy cząsteczkowej 65000, Filtral 12, Hospal) na końcu dystalnym. Sondy perfundowano z szybkością 1.0 μl/min zmodyfikowanym roztworem Ringera (0.01 m bufor fosforanu sodu, pH 7.4, 1.3 mmCaCl2 , 3.0 mmKCl , 1.0 mmMgCl2 , 147 mmNaCl) przy użyciu gazoszczelnej strzykawki (Hamilton, Reno, NV) i pompy strzykawkowej (model 22, Harvard Apparatus, South Natick, MA). Do zabezpieczenia sondy mikrodializy wewnątrz kaniuli prowadzącej użyto kołnierza prowadzącego sondę do mikrodializy. Do ochrony rurki sondy zastosowano stalową cewkę przymocowaną do obrotowego uchwytu na ciecz (Instech 375s) zamontowanego na górze komory testowej ( Fiorino i in., 1993 ).
Anality z mikrodializatu, w tym DA i jego metabolity – kwas dihydroksyfenylooctowy (DOPAC) i kwas homowanilinowy (HVA), rozdzielono metodą chromatografii z odwróconą fazą (kolumna Ultrasphere; Beckman, Fullerton, Kalifornia, ODS 5 μm, 15 cm, 4.6 mm, średnica wewnętrzna) przy użyciu buforu octanu sodu o stężeniu 0.083 m i pH 3.5 (5% metanol). Stężenia analitów oznaczono ilościowo metodą detekcji elektrochemicznej (EC). Aparatura składała się z pompy Bio-Rad (Richmond, Kalifornia), dwupozycyjnego dozownika EC10W firmy Valco Instruments (Houston, Teksas), detektora EC Coulochem II firmy ESA (Bedford, Massachusetts) oraz dwukanałowego rejestratora wykresów (Kipp and Zonen, Bohemia, Nowy Jork). Parametry detektora elektrochemicznego były następujące: elektroda 1, +450 mV; elektroda 2, −300 mV; i komora ochronna, −450 mV. Typowe odzyski sondy, przeprowadzone in vitro i w temperaturze pokojowej, wyniosły 22% dla DA, 18% dla DOPAC i 18% dla HVA.
WYNIKI
Zachowanie
Pomiary behawioralne z eksperymentu z efektem Coolidge'a przedstawiono w tabeli 1. Czasy oczekiwania na wstąpienie, wejście w kontakt z nasieniem i wytrysk, a także czas po wytrysku po pierwszej ejakulacji były podobne do tych z poprzedniej sesji treningowej (dane nie zostały pokazane). Sugeruje to, że zabieg mikrodializy nie zmienił normalnych zachowań seksualnych. Rozwój nasycenia seksualnego, jak wskazano na podstawie średniej liczby ejakulacji przed spełnieniem kryterium (7.8 ± 0.5), stopniowego spadku liczby intromisji poprzedzających każdą ejakulację i stopniowego wzrostu odstępu poejakulacyjnego (dane nie pokazano), był podobny do tego zgłoszonego w poprzednich badaniach ( Beach i Jordan, 1956 ; Fowler i Whalen, 1961 ; Fisher, 1962 ; Bermant i in., 1966 ; Rodriguez-Manzo i Fernandez-Guasti, 1994 ; Mas i in., 1995d ). Zaobserwowano zmienność indywidualną w odniesieniu do liczby ejakulacji osiągniętych z samicą 1, czasu spędzonego na kopulacji z samicą 1 i liczby prezentacji samicy 1 wymaganych do osiągnięcia kryterium nasycenia (Tabela 1 , dół). Niektóre szczury wymagały wielokrotnego ponownego wprowadzenia samicy 1, aż do zakończenia fazy 5 ( n = 3). Umieszczenie samicy 1 za ekranem i usunięcie przegrody mogło stanowić podstawowe sygnały apetytu prowadzące do kopulacji. Należy również zauważyć, że kryterium nasycenia wynoszące 30 minut bez kopulacji, choć stosowane wcześniej (Beach i Jordan, 1965; Mas i in., 1995b ), jest arbitralne i nie gwarantuje, że szczur nie kopulowałby, gdyby miał więcej czasu. Mimo to, opóźnienia lub procedury usunięcia i ponownego wprowadzenia samicy 1 nie skutkowały niezawodnie ponowną kopulacją z samicą 1 (np. w fazach 4 i 5).
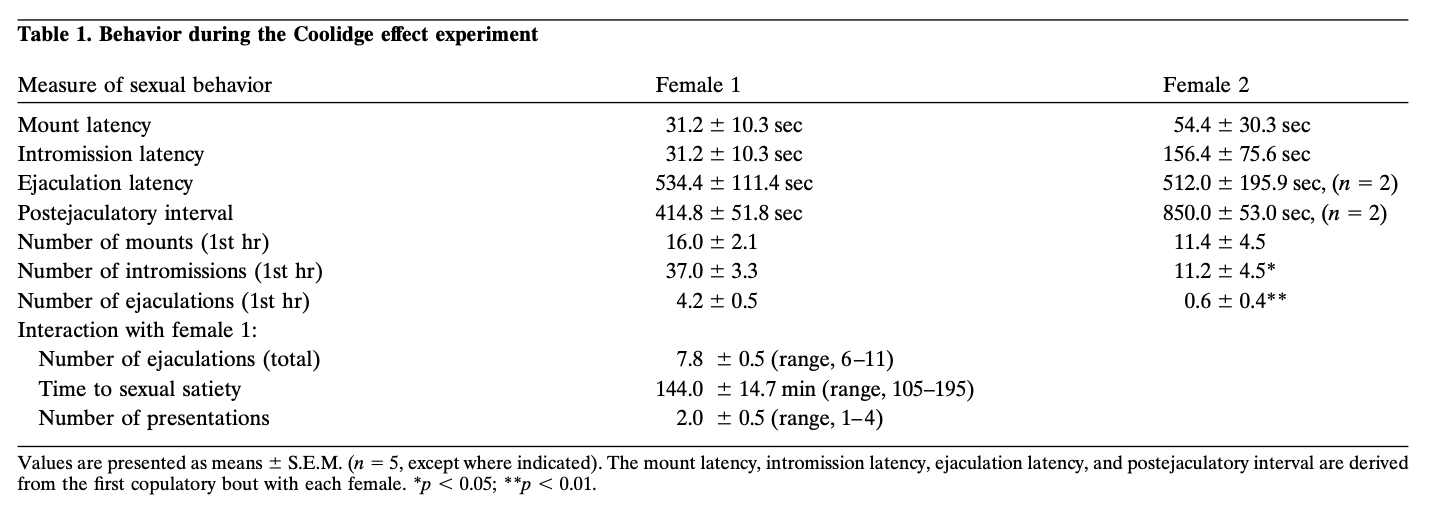
Zachowanie podczas eksperymentu efektu Coolidge
U wszystkich szczurów zaobserwowano efekt Coolidge'a. Aktywność związana z umieszczeniem samicy 2 za ekranem, a w szczególności usunięcie przegrody, mogła przyczynić się do tego wyniku, ale te zdarzenia same w sobie nie były wystarczające do wznowienia kopulacji na wcześniejszym etapie eksperymentu. Porównania między pomiarami zachowań seksualnych z samicą 1 i samicą 2 przeprowadzono za pomocą testów t z poprawką Bonferroniego. Chociaż opóźnienia w kopulacji i intromisji w odpowiedzi na samicę 2 nie różniły się istotnie od tych w pierwszej rundzie kopulacji z samicą 1, ogólnie rzecz biorąc, zachowania seksualne z samicą 2 były mniej silne, o czym świadczyła istotnie mniejsza liczba ejakulacji (średnio 0.6 vs 4.2; F = 49.86; p < 0.01) i intromisji (średnio = 11.2 vs 37.0; F = 20.17; p < 0.05) w ciągu pierwszej godziny. Liczba kopulacji w pierwszej godzinie u samic 1 i 2 nie różniła się istotnie.
Ważne jest, aby zauważyć, że samice używane podczas nasycającej części eksperymentu (tj. Samica 1) nadal wykazywały silne zachowanie prokretacyjne (tj. Skakanie i skakanie) i zachowanie receptywne (tj. Lordozę) przez cały czas trwania ich kontaktu z mężczyzną. .
Neurochemia
Podstawowe nanomolowe stężenia DA i jej metabolitów w mikrodializatach, przedstawione jako średnia ± SEM, z pierwszych trzech próbek wyjściowych wynosiły: DA: 3.0 ± 0.7; DOPAC: 619.1 ± 77.7; i HVA: 234.2 ± 49.0 (bez korekty o odzysk sondy; n = 5). Wartości te odpowiadały 100% wartości wyjściowych.
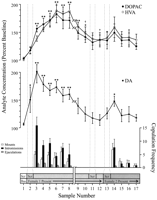
Do analiz neurochemicznych wykorzystano punkty danych zdefiniowane behawioralnie, odpowiadające każdej fazie eksperymentu i wspólne dla każdego szczura. Obejmowały one: (1) siedem próbek pobranych po pierwszym wprowadzeniu samicy 1, (2) cztery próbki pobrane po braku zachowań kopulacyjnych u samicy 1 oraz (3) pięć próbek po prezentacji samicy 2. Rysunek 1 ilustruje zmiany stężeń DA (wykres liniowy, środek ) i metabolitów DA (wykres liniowy, góra ) równolegle do zachowań kopulacyjnych (wykres słupkowy, dół ) podczas testu efektu Coolidge'a.
Zobacz większą wersję:
Rys.. 1.
Neurochemiczne korelaty jądra półleżącego zachowań seksualnych podczas efektu Coolidge'a. Pierwsze osiem próbek reprezentuje chronologicznie ciągłe punkty danych z faz 1 do 3. Próbka 1 to czwarta i ostatnia próbka bazowa przedkopulacyjna ( Bas ). Próbka 2 przedstawia wprowadzenie samicy 1 za ekran ( Scr ). Po 15 minutach ekran został usunięty, a szczurom pozwolono kopulować (próbki 3–8). Przerwa na osi x odpowiada wykluczeniu danych od trzech szczurów, które kopulowały przez dłuższy czas z początkową samicą. Ostatnie dziewięć próbek było również ciągłe chronologicznie. Próbki 9 i 10 odpowiadają okresowi nasycenia fazy 3 (tj. 30 minut bez montażu). Następnie samicę 1 ponownie włożono za ekran (próbka 11), a 15 minut później ekran został usunięty (próbka 12). Po 15 minutach bez kopulacji samica 2 została umieszczona za ekranem (próbka 13). Próbki 14–17 odpowiadają kopulacji z samicą 2. Liczbę montaży, intromisji lub ejakulacji powiązaną z każdą 15-minutową próbką mikrodializy pokazano na dolnym wykresie słupkowym . Dane neurochemiczne wyrażono jako procent stężeń wyjściowych. Zmiany w odpływie NAC DA ( wypełnione kwadraty ), DOPAC ( wypełnione kółka ) i HVA ( wypełnione kółka ) przedstawiono jako wykresy liniowe . Dokonano następujących porównań: próbka wyjściowa 1 w porównaniu z próbkami 2–10; nowa próbka wyjściowa 10 w porównaniu z próbkami 11 i 12; nowa próbka wyjściowa 12 w porównaniu z próbkami 13–17 (* p < 0.05; ** p < 0.01). Niezależne testy t wykonano między wartościami wyjściowymi (próbki 1, 10 i 12). W przypadku istotnych różnic w stosunku do pierwszej wartości bazowej (próbka 1), † p < 0.05.
Przeprowadzono oddzielne jednokierunkowe analizy wariancji z powtarzanymi pomiarami dla danych neurochemicznych związanych z samicą 1 (próbki 1–12) i samicą 2 (próbki 12–17). Porównania a priori przeprowadzono przy użyciu testu wielokrotnych porównań Dunna ( t Bonferroniego ). Wykonano następujące trzy główne porównania: (1) początkowa linia bazowa (próbka 1) w porównaniu z próbkami 2–10 (pierwsze narażenie na samicę 1), (2) druga linia bazowa (próbka 10) w porównaniu z próbkami 11 i 12 (ponowne narażenie na samicę 1) oraz (3) trzecia linia bazowa (próbka 12) w porównaniu z próbkami 13–17 (narażenie na samicę 2).
Zaobserwowano znaczącą ogólną zmianę w odpływie DA w odpowiedzi na samicę 1 [ F (11,44) = 8.48; p < 0.001] i samicę 2 [ F (5,20) = 2.83; p < 0.05]. Stwierdzono znaczący wzrost odpływu DA, gdy samica 1 znajdowała się za ekranem (+44%, p < 0.05; próbka 2). Podczas kopulacji stężenia DA wzrastały dalej, osiągając wartość maksymalną (+95%; p < 0.01) podczas pierwszej rundy kopulacji (próbka 3). Stężenie DA pozostawało podwyższone przez cały okres kopulacji i powróciło do wartości wyjściowych dopiero w 30-minutowym okresie, w którym nie doszło do montażu (próbki 9 i 10). Ani ponowne wprowadzenie samicy 1 za ekran (próbka 11), ani możliwość fizycznej interakcji, ale bez montażu (próbka 12), nie podniosły stężeń DA w stosunku do drugiej wartości bazowej (próbka 10). Obecność samicy 2 za ekranem (próbka 13) spowodowała niewielki wzrost odpływu DA (12%) od trzeciej wartości bazowej (próbka 12), który nie osiągnął istotności statystycznej. Ponowna kopulacja z samicą 2 spowodowała istotny (34%) wzrost ( p < 0.05) odpływu DA podczas pierwszej próbki kopulacji (próbka 14). Chociaż słabe zachowania kopulacyjne trwały przez kolejne trzy próbki, stężenia DA spadły do wartości bazowych (próbki 15–17). Niezależne testy t przeprowadzone wśród próbek „bazowych” (tj. 1, 10 i 12) wykazały, że wartości te nie różniły się istotnie.
U trzech szczurów, które wznowiły kopulację po ponownym wprowadzeniu samicy 1, stężenia DA NAC wzrosły, gdy kobieta 1 była obecna za ekranem (zakres, 25-47%) i podczas kopulacji (zakres, 13-37%), w stosunku do próbki właśnie przed ponownym wprowadzeniem samicy. Wzrost ten nastąpił jednak tylko wtedy, gdy zachowanie seksualne było energiczne i doprowadziło do ejakulacji.
Istotne zmiany w stężeniach DOPAC [ F (11,44) = 9.57; p < 0.001] i HVA [ F (11,44) = 12.47; p < 0,001] zaobserwowano w odpowiedzi na samicę 1, ale nie na samicę 2. Stężenia metabolitów nieznacznie wzrosły (+15% w obu przypadkach) podczas prezentacji samicy 1 za ekranem (próbka 2), ale nie było to istotne statystycznie. Odnotowano jednak istotne wzrosty stężeń DOPAC i HVA podczas kopulacji (próbki 3–8), osiągając wartości maksymalne (odpowiednio +80 i +86%; p < 001) po 60 minutach (próbka 6 w obu przypadkach). Chociaż stężenia metabolitów zmniejszyły się w okresie braku aktywności seksualnej pod koniec kontaktu z samicą 1 (próbki 9 i 10), stężenia nadal pozostały podwyższone w stosunku do wartości wyjściowych ( p < 0.05 w obu przypadkach). Ponowne wprowadzenie samicy 1 za ekran (próbka 11), dostęp do samicy 1 po usunięciu ekranu (próbka 12) oraz wprowadzenie samicy 2 (próbka 13) nie spowodowały żadnych zmian w stężeniach metabolitów. Niewielkie, ale statystycznie nieistotne, wzrosty stężeń DOPAC i HVA (+23% w obu przypadkach) w stosunku do wartości wyjściowych (próbka 12) odpowiadały pierwszej rundzie kopulacji z samicą 2 (próbka 14). Wzrost ten był jednak krótkotrwały i spadł do wartości wyjściowych dla pozostałych trzech próbek (15–17). Niezależne testy t przeprowadzone na próbkach „bazowych” (tj. 1, 10 i 12) wykazały, że druga i trzecia wartość bazowa (odpowiednio próbki 10 i 12), choć nie różniły się od siebie, pozostały istotnie podwyższone w porównaniu z pierwszą próbką bazową w przypadku DOPAC i HVA ( p < 0.05 w obu przypadkach).
Histologia
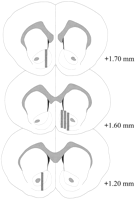
Sondy mikrodializowe zlokalizowano w NAC (ryc. 2 ) w zakresie od +1.20 do +1.70 mm od bregma (płaskiej czaszki). Zmienność zaobserwowano również w płaszczyźnie środkowo-bocznej; dane odzwierciedlają pobieranie próbek z podregionów skorupy i rdzenia NAC.
Zobacz większą wersję:
Rys.. 2.
Lokalizacja sond mikrodializacyjnych w obrębie NAC samców szczurów użytych w eksperymencie z efektem Coolidge'a. Zacieniowane prostokąty odpowiadają odsłoniętym obszarom błony sond mikrodializacyjnych. Serię przekrojów czołowych mózgu przerysowano na podstawie pracy Paxinosa i Watsona (1986).
DYSKUSJA
Zgodnie z wcześniejszymi raportami, obecne wyniki wykazują zwiększoną transmisję mezolimbicznej DA związaną z komponentami apetytywnymi i konsumpcyjnymi zachowania seksualnego samca szczura, co oceniono za pomocą mikrodializy in vivo ( Mas i in., 1990 ; Pfaus i in., 1990 ; Pleim i in., 1990 ; Damsma i in., 1992 ; Wenkstern i in., 1993 ; Fumero i in., 1994 ; Mas i in., 1995a , b , d ). Ponadto wyniki te dostarczają neurochemicznego korelatu dla nasycenia seksualnego i późniejszego ponownego rozpoczęcia kopulacji w odpowiedzi na nową receptywną samicę (efekt Coolidge'a). Obecne dane sugerują, że właściwości stymulujące nowej receptywnej samicy mogą służyć do zwiększenia transmisji NAC DA u nasyconego seksualnie samca szczura, co z kolei może być związane z ponownym rozpoczęciem zachowań seksualnych. Pierwszym dowodem na to jest niewielki wzrost NAC DA podczas prezentacji nowej samicy za ekranem, a najbardziej przekonująco widać to jako wyraźniejszy wzrost podczas ponownej kopulacji z samicą 2 (ryc. 1 ).
Obecność pierwszej receptywnej samicy za ekranem spowodowała silny wzrost apetytywny wypływu NAC DA (44% od linii bazowej) o podobnej wielkości do tego, co odnotowano we wcześniejszych eksperymentach z użyciem podobnego projektu (30%, Pfaus i in., 1990 ; 35%, Damsma i in., 1992 ). Zgodna z tymi badaniami była również obserwacja, że wypływ NAC DA był dodatkowo wzmacniany podczas kopulacji (do >95% powyżej linii bazowej w obecnym eksperymencie). Chociaż możemy postrzegać zachowania konsumpcyjne jako związane ze zwiększonym uwalnianiem NAC DA ( Wenkstern i in., 1993 ; Wilson i in., 1995 ), ważne jest, aby zbadać terminy „apetyczny” i „konsumpcyjny” w kontekście zachowań seksualnych. Podczas gdy faza, w której samica jest obecna za ekranem, jest wyłącznie apetytywna lub przygotowawcza, zachowania podczas fazy kopulacji nie można uważać za czysto konsumpcyjne. Ponieważ termin „apetyczny” można stosować do opisu wszystkich zachowań prowadzących do osiągnięcia celu (kopulacji), podstawowe zachowanie samca w fazie „konsumpcyjnej” najlepiej opisać jako apetyczne; samiec poświęca większość czasu i wysiłku na nagabywanie samicy w celu kopulacji. W związku z tym możemy powiązać maksymalną transmisję DA NAC z komponentami konsumpcyjnymi, jak również intensywnie apetycznymi zachowań seksualnych samców szczurów.
Dostęp do drugiej, nowej samicy skutkował ponowną kopulacją u każdego osobnika. Poprzednie badania wykazały, że większość szczurów, którym pozwolono kopulować do sytości, przy użyciu podobnego protokołu behawioralnego do tego zastosowanego w niniejszym eksperymencie, nie wznowiła kopulacji po 24 godzinach testu ( Beach i Jordan, 1956 ). Jest prawdopodobne, że obecność nowych właściwości bodźca samicy 2, które mogły obejmować wskazówki węchowe, a także wizualne i słuchowe, skutkowała ponowną kopulacją. Interesującym pytaniem, na które wciąż nie ma odpowiedzi, jest to, za pomocą jakiego mechanizmu samiec szczura odróżnia nową samicę od samicy, z którą niedawno się kopulował. Miejsce tego mechanizmu może leżeć w głównym układzie węchowym. Donoszono, że integralność tego układu jest niezbędna dla efektu Coolidge'a u chomików ( Johnston i Rasmussen, 1984 ). Układ węchowy lemieszowo-nosowo-dodatkowy, w którym niedawno opisano proces pamięci feromonowej u myszy ( Kaba i in., 1994 ), jest również głównym kandydatem. W tym względzie należy zauważyć, że wzrosty transmisji NAC DA mierzono za pomocą woltamperometrii in vivo u samców szczurów prezentowanych w ściółce, która była narażona na działanie samic szczurów w rui ( Louillot i in., 1991 ; Mitchell i Gratton, 1992 ). Ponadto zastosowanie K + bezpośrednio do warstwy nerwu lemieszowo-nosowego dodatkowej opuszki węchowej, jak również do samej dodatkowej opuszki węchowej, było wystarczające do zwiększenia transmisji NAC DA ( Mitchell i Gratton, 1992 ).
Pierwszy min. Czas 15 kopulacji z samicą 2 wiązał się ze znacznym wzrostem NAC DA. W przeciwieństwie do żeńskiego 1, interakcja z żeńską 2 nie powodowała zwiększenia DA NAC o tej samej wielkości podczas faz apetycznych (12%) lub konsumpcyjnych (34%). Te niewielkie wzrosty DA w NAC są jednak dobrze skorelowane z obniżonym poziomem zachowań seksualnych w przypadku kobiet 2 w porównaniu z kobietami 1. Stężenie metabolitów pozostawało podwyższone podczas fazy sytości, co spowodowało nowe wyjściowe stężenia (próbki 10 i 12), które były znacznie podwyższone od początkowej wartości początkowej (próbka 1).
Opóźnienie czasowe we wzroście stężeń DOPAC i HVA podczas kopulacji jest zgodne z ich powstawaniem jako metabolitów związku macierzystego, DA. Sugerowano, że stężenia metabolitów mikrodializowanych, przynajmniej podczas naturalnego zachowania, które nie jest sterowane farmakologicznie, stanowią użyteczny wskaźnik aktywności neuronalnej ( Damsma i in., 1992 ; Fumero i in., 1994 ). Fakt, że stężenia metabolitów pozostawały podwyższone nawet w okresach braku aktywności seksualnej w tym eksperymencie, gdy stężenia DA powróciły do wartości wyjściowych sprzed testu, podważa tę sugestię.
Trwałe podwyższenie stężeń metabolitów DA obserwowane w tym eksperymencie odzwierciedla profil medialnego obszaru preoptyku (mPOA) metabolitów DA obserwowanych u szczurów w pierwszym dniu po kopulacji do sytości (Mas i wsp., 1995a,b). Trwałe podwyższenie stężenia DOPAC i HVA w NAC lub mPOA nie zawsze jest obserwowane, gdy okres krycia jest ustalony, znacznie krótszy niż czas wymagany do osiągnięcia nasycenia. Na przykład wiele badań wykazało, że stężenia DOPAC wzrosły i pozostały podwyższone podczas kopulacji, ale spadły do wartości wyjściowych wkrótce po usunięciu samicy (Pfaus i wsp., 1990; Pleim i wsp., 1990; Damsma i wsp., 1992;Hull i wsp., 1993; Wenkstern i wsp., 1993; Hull i wsp., 1995). W badaniu przez Mas i in. (1995b), podstawowe pozakomórkowe stężenia DOPAC i HVA w mPOA pozostawały podwyższone w ciągu kolejnych 4, co odpowiada okresowi braku aktywności seksualnej. Do czwartego dnia, tuż przed ponownym rozpoczęciem kopulacji, podstawowe stężenia metabolitów były zbliżone do wartości presygacji. Autorzy porównali zmiany neurochemiczne do zmian obserwowanych po podaniu blokerów receptora DA (Zetterström i wsp., 1984; Imperato i DiChiara, 1985) i zasugerowali, że stan bierności seksualnej może być zależny od uwalniania prolaktyny, która może działać jako "endogenny neuroleptyk" (Mas i wsp., 1995a,b,d). Oczywiste jest, że podawaniu neuroleptycznemu towarzyszy wzrost pozakomórkowych stężeń metabolitów i wypływu DA (Zetterström i wsp., 1984; Imperato i DiChiara, 1985). Niestety, Mas i in. (1995a,b) nie były w stanie wykryć stężeń mPOA DA. W niniejszym badaniu stężenia DA w NAC powróciły do wartości przedwzrostowych, podczas gdy stężenia DOPAC i HVA pozostawały podwyższone. Ten wzór jest niezgodny z rolą endogennego działania neuroleptycznego w NAC, aby wywołać sytość seksualną.
Biorąc pod uwagę zaangażowanie neuronów DA układu mezolimbicznego w zachowania motywowane ( Fibiger i Phillips, 1986 ; Blackburn i in., 1992 ; Kalivas i in., 1993 ; LeMoal, 1995 ) oraz ich wrażliwość na nowe bodźce środowiskowe ( Fabre i in., 1983 ; Schultz, 1992 ; Mirenowicz i Schultz, 1994 ), zaobserwowane zwiększenie pozakomórkowych stężeń DA NAC w odpowiedzi na nową samicę jest zgodne z hipotezą, że aktywność w tym układzie DA ma znaczenie dla ponownego rozpoczęcia zachowań seksualnych. Ponadto doniesienia o wzroście apetytywnym i konsumpcyjnym transmisji DA ( Hull i in., 1993 , 1995 ; Mas i in., 1995b ; Sato i in., 1995 ) i aktywności neuronalnej ( Shimura i in., 1994 ) w mPOA samców szczurów podczas zachowań seksualnych sugerują, że struktura ta może również przyczyniać się do ponownej kopulacji charakterystycznej dla efektu Coolidge'a.
Zgodnie z ogólną rolą mezolimbicznego układu DA w zachowaniu motywowanym, dobrze wiadomo, że zewnątrzkomórkowe stężenia DA są również podwyższone przed, w trakcie i bezpośrednio po spożyciu posiłku, a powrót do wartości wyjściowych następuje około 30 minut później ( Wilson i in., 1995 ). Wiadomo, że sytość wywołana przez pożywienie jest zależna od jego właściwości sensorycznych. Ludzie i zwierzęta odrzucają pożywienie, którym zostali nakarmieni, do sytości i spożywają inne pokarmy, które nie zostały zjedzone ( Rolls, 1986 ). Nasuwa się więc pytanie, czy pozakomórkowy odpływ DA w NAC byłby selektywnie zwiększony przez prezentację nowego rodzaju pożywienia, ale nie przez pożywienie spożyte niedawno do sytości w sposób analogiczny do opisanego w niniejszym badaniu w kontekście motywacji seksualnej. Jeśli zostanie potwierdzona, ta ogólna zależność między właściwościami sensorycznymi naturalnych nagród, sytością i mezolimbiczną transmisją dopaminy będzie sugerować kluczową rolę tego układu nerwowego w regulacji procesów motywacyjnych, których zaburzenie może prowadzić do poważnych zaburzeń odżywiania i funkcji seksualnych.
LITERATURA
- ↵
- Plaża FA,
- Jordan L
(1956) Seksualne wyczerpanie i regeneracja u samca szczura. QJ Exp Psychol 8: 121-133.
- ↵
- Bermant G,
- Lott DF,
- Anderson L
(1966) Charakterystyka czasowa efektu Coolidge'a w zachowaniu kopulacyjnym zachowań samców. J Comp Physiol Psychiatry 65: 447-452.
- ↵
- Blackburn JR,
- Pfaus JG,
- Phillips AG
(1992) Dopamina działa w zachowaniach apetycznych i obronnych. Prog Neurobiol 39: 247-279.
- ↵
- Damsma G,
- Pfaus JG,
- Wenkstern D,
- Phillips AG,
- Fibiger HC
(1992) Zachowania seksualne zwiększają transmisję dopaminy w jądrze półleżącym i prążkowiu samców szczurów: porównanie z nowością i lokomocją. Behav Neurosci 106: 181-191.
- ↵
- Fabre M,
- Rolls ET,
- Ashton JP,
- Williams G
(1983) Aktywność neuronów w brzusznym regionie nakrywkowym małpy zachowującej się. Behav Brain Res 9: 213-235.
- ↵
- Fibiger HC,
- Phillips AG
(1986) Nagroda, motywacja, poznanie: psychobiologia mezotelencefalicznych układów dopaminowych. w podręczniku fizjologii: układ nerwowy IV, eds Bloom FE, Geiger SD (American Physiology Society, Bethesda, MD), str. 647-675.
- ↵
- Fiorino DF,
- Coury AG,
- Fibiger HC,
- Phillips AG
(1993) Elektryczna stymulacja miejsc nagradzania w brzusznym obszarze nakrywkowym zwiększa transmisję dopaminy w jądrze półleżącym szczura. Behav Brain Res 55: 131-141.
- ↵
- Fisher A
(1962) Wpływ zmienności bodźca na nasycenie seksualne u samca szczura. J Comp Physiol Psychiatry 55: 614-620.
- ↵
- Fowler H,
- Whalen RE
(1961) Odmiana bodźca motywacyjnego i zachowań seksualnych u samca szczura. J Comp Physiol Psychiatry 54: 68-71.
- ↵
- Fumero B,
- Fernendez-Vera JR,
- Gonzalez-Mora JL,
- Mas M
(1994) Zmiany w obrocie monoaminami w obszarach przodomózgowia związanych z męskim zachowaniem seksualnym: badanie mikrodializacyjne. brain Res 662: 233-239.
- ↵
- Holmes GM,
- Holmes DG,
- Sachs BD
(1987) System gromadzenia danych oparty na IBM-PC do rejestrowania zachowań seksualnych gryzoni i do ogólnego rejestrowania zdarzeń. Physiol Behav 44: 825-828.
- ↵
- Hull EM,
- Eaton RC,
- Moses J,
- Lorrain DS
(1993) Kopulacja zwiększa aktywność dopaminy w środkowej części przedotropowej samców szczurów. Life Sci 52: 935-940.
- ↵
- Hull EM,
- Jianfang D,
- Lorrain DS,
- Matuszewich L.
(1995) Pozakomórkowa dopamina w środkowym obszarze przedwzrokowym: implikacje dla motywacji seksualnej i hormonalnej kontroli kopulacji. J Neurosci 15: 7465-7471.
- ↵
- Imperato A,
- DiChiara G
(1985) Uwalnianie dopaminy i metabolizm u obudzonych szczurów po układowych neuroleptykach, jak badano przez dializę trans-prążkowaną. J Neurosci 5: 297-306.
- ↵
- Johnston RE,
- Rasmussen K
(1984) Indywidualne rozpoznawanie samic chomików przez mężczyzn: rola wskaźników chemicznych i układu węchowego i nosowo-wargowego. Physiol Behav 33: 95-104.
- ↵
- Kaba H,
- Hayashi Y,
- Higuchi T,
- Nakanishi S
(1994) Indukowanie pamięci węchowej przez aktywację metabotropowego receptora glutaminianu. Nauka 265: 262-264.
- ↵
- Kalivas PW,
- Sorg BA,
- Haczyki MS
(1993) Farmakologia i układ nerwowy uczulenia na środki psychostymulujące. Behav Pharmacol 4: 315-334.
- ↵
- LeMoal M
(1995) Mezokortykolimbiczne neurony dopaminergiczne. Role funkcjonalne i regulacyjne. w Psychopharmacology: czwarta generacja postępu, eds Bloom FE, Kupfer DJ (Raven, Nowy Jork), pp 283-294.
- ↵
- Louillot A,
- Gonzalez-Mora JL,
- Guadalupe T,
- Mas M
(1991) Seksualne bodźce zapachowe wywołują selektywny wzrost uwalniania dopaminy w jądrze półleżącym samców szczura. brain Res 553: 313-317.
- ↵
- Mas M,
- Gonzalez-Mora JL,
- Louillot A,
- Sole C,
- Guadalupe T
(1990) Zwiększone uwalnianie dopaminy w jądrze półleżącym kopulujących samców szczurów, o czym świadczy woltametria in vivo. Neurosci Lett 110: 303-308.
- ↵
- Mas M,
- Fumero B,
- Fernandez-Vera JR,
- Gonzalez-Mora JL
(1995a) Neurochemiczne korelaty wyczerpania seksualnego i regeneracji, oceniane za pomocą mikrodializy in vivo. brain Res 675: 13-19.
- ↵
- Mas M,
- Fumero B,
- Gonzalez-Mora JL
(1995b) Monitorowanie woltamperometryczne i mikrodializacyjne uwalniania neurotransmiterów w mózgu podczas interakcji społeczno-seksualnych. Behav Brain Res 71: 69-79.
- ↵
- Mas M,
- Fumero B,
- Perez-Rodriguez I
(1995c) Wywoływanie zachowań godowych przez apomorfinę u seksualnie sutych szczurów. Eur J Pharmacol 280: 331-334.
- ↵
- Mas M,
- Fumero B,
- Perez-Rodriguez I,
- Gonzalez-Mora JL
(1995d) Neurochemia seksualnego sytości. Eksperymentalny model zahamowanego pożądania. w farmakologii funkcji seksualnych i dysfunkcji, wyd. Bancroft J (Raven, Nowy Jork), str. 115-126.
- ↵
- Mirenowicz J,
- Schultz W
(1994) Znaczenie nieprzewidywalności w odpowiedziach na nagrody w neuronach dopaminergicznych u naczelnych. J Neurophysiol 72: 1024-1027.
- ↵
- Mitchell JB,
- Gratton A
(1992) Mezolimbiczne uwalnianie dopaminy wywołane przez aktywację dodatkowego układu węchowego: szybkie badanie chronoamperometryczne. Neurosci Lett 140: 81-84.
- ↵
- Paxinos G,
- Watson C
(1986) Mózg szczura o współrzędnych stereotaktycznych (2n ed). (Academic, San Diego).
- ↵
- Pfaus JG,
- Damsma G,
- Nomikos GG,
- Wenkstern D,
- Blaha CD,
- Phillips AG,
- Fibiger HC
(1990) Zachowania seksualne zwiększają transmisję centralnej dopaminy u samca szczura. brain Res 530: 345-348.
- ↵
- Pfaus JG,
- Everitt BJ
(1995) Psychofarmakologia zachowań seksualnych. w Psychopharmacology: czwarta generacja postępu, eds Bloom FE, Kupfer DJ (Raven, Nowy Jork), pp 743-758.
- ↵
- Pfaus JG,
- Gorzalka BB
(1987) Opioidy i zachowania seksualne. Neurosci Biobehav Rev 11: 1-34.
- ↵
- Phillips AG,
- Blaha CD,
- Pfaus JG,
- Blackburn JR
(1992) Neurobiologiczne korelaty pozytywnych stanów emocjonalnych: dopaminy, przewidywania i nagrody. w Międzynarodowym przeglądzie badań nad emocjami, ed Strongman (Wiley, New York), pp 31-50.
- ↵
- Pleim ET,
- Matochik JA,
- Barfield RJ,
- Auerbach SB
(1990) Korelacja uwalniania dopaminy w jądrze półleżącym z męskim zachowaniem seksualnym u szczurów. brain Res 524: 160-163.
- ↵
- Rodriguez-Manzo G,
- Fernandez-Guasti A
(1994) Odwrócenie seksualnego wyczerpania przez czynniki serotoninergiczne i noradrenergiczne. Behav Brain Res 62: 127-134.
- ↵
- Rodriguez-Manzo G,
- Fernandez-Guasti A
(1995a) Udział centralnego układu noradrenergicznego w przywracaniu zachowań kopulacyjnych seksualnie wyczerpanych szczurów przez johimbinę, nalokson i 8-OH-DPAT. Brain Res Bull 38: 399-404.
- ↵
- Rodriguez-Manzo G,
- Fernandez-Guasti A
(1995b) Antagoniści opioidowi i zjawisko nasycenia seksualnego. Psychopharmacol 122: 131-136.
- ↵
- Rolls BJ
(1986) Uczucie sytości specyficzne dla zmysłowego. Nutr Rev 44: 93-101.
- ↵
- Salamone JD
(1996) Behawioralna neurochemia motywacji: zagadnienia metodologiczne i koncepcyjne w badaniach nad dynamiczną aktywnością jądra accumbensa dopaminy. J Neurosci Methods 64: 137-149.
- ↵
- Sato Y,
- Wada H,
- Horita H,
- Suzuki N,
- Shibuya A,
- Adachi H,
- Kato R,
- Tsukamoto T,
- Kumamoto Y
(1995) Uwalnianie dopaminy w przyśrodkowej okolicy przedotropowej podczas zachowań kopulacyjnych u szczurów. brain Res 692: 66-70.
- ↵
- Schultz W
(1992) Aktywność neuronów dopaminowych w zachowujących się prymach. Semin Neurosci 4: 129-138.
- ↵
- Shimura T,
- Yamamoto T,
- Shimokochi M
(1994) Medialny obszar preoptyczny jest zaangażowany zarówno w pobudzenie seksualne, jak i wydajność u samców szczurów: ponowna ocena aktywności neuronów u swobodnie poruszających się zwierząt. brain Res 640: 215-222.
- ↵
- Wenkstern D,
- Pfaus JG,
- Fibiger HC
(1993) Transmisja dopaminy zwiększa się w jądrze półleżącym samców szczurów podczas ich pierwszej ekspozycji na samice szczurów płcio wych. brain Res 618: 41-46.
- ↵
- Wilson C,
- Nomikos GG,
- Collu M,
- Fibiger HC
(1995) Dopaminergiczne korelaty zachowań motywowanych: znaczenie napędu. J Neurosci 15: 5169-5178.
- ↵
- Wilson JR,
- Kahn RE,
- Plaża FA
(1963) Modyfikacja zachowań seksualnych samców szczura wytwarzanych przez zmianę bodźca płci żeńskiej. J Comp Physiol Psychiatry 56: 636-644.
- ↵
- Zetterström T,
- Sharp T,
- Ungerstedt U
(1984) Wpływ leków neuroleptycznych na uwalnianie dopaminy i metabolizm prążkowia u szczurów obudzonych badanych metodą dializy śródmózgowej. Eur J Pharmacol 106: 27-37.
artykuły cytujące ten artykuł
-
Endogenna, opioidowa neuroplastyczność neuronów dopaminergicznych w ośrodkowym obszarze tegmentalnym wpływa na nagrodę naturalną i opiatową Journal of Neuroscience, 25 June 2014, 34 (26): 8825-8836
-
Brak równowagi w wrażliwości na różne rodzaje nagród w patologicznym hazardzie Brain, 1 August 2013, 136 (8): 2527-2538
-
Ustawa o przyznawaniu nagród w zakresie ochrony środowiska naturalnego i lekarstw w sprawie wspólnych mechanizmów plastyczności nerwowej z {Delta} FosB jako kluczowym mediatorem Journal of Neuroscience, 20 February 2013, 33 (8): 3434-3442
-
Neuronalne reakcje w jądrze Nucleus Accumbens podczas zachowań seksualnych u samców szczura Journal of Neuroscience, 1 February 2012, 32 (5): 1672-1686
-
Romantyczna miłość: system mózgu ssaka dla wyboru partnera Filozoficzne transakcje Royal Society B: Biological Sciences, 29 December 2006, 361 (1476): 2173-2186
-
Hedoniczne gorące miejsca w mózgu The Neuroscientist, 1 December 2006, 12 (6): 500-511
-
Modulacja przez jądra centralne i boczno-boczne Amygdalar dopaminergicznych korelatów karmienia do sytości w jądrze szczura Accumbens i przyśrodkowej korze przedczołowej Journal of Neuroscience, 15 December 2002, 22 (24): 10958-10965
-
Częstotliwość stężeń dopaminy w stężeniach dopaminowych Wzrost w szczęce grzbietowej i brzusznej samców szczurów w trakcie wprowadzania gatunków konspecyficznych Journal of Neuroscience, 1 December 2002, 22 (23): 10477-10486
-
Recenzja książki: Dynamika pozakomórkowej dopaminy w ostrych i chronicznych działaniach kokainy Neurolog, 1 August 2002, 8 (4): 315-322
-
Różnicowy udział NMDA, AMPA / Kainate i receptorów dopaminowych w jądrze Nucleus Accumbens Rdzeń w nabywaniu i wykonywaniu pawiawskich zachowań Journal of Neuroscience, 1 December 2001, 21 (23): 9471-9477
-
Kontrola zachowań związanych z poszukiwaniem kokainy przez bodźce związane z narkotykami u szczurów: wpływ na odzyskanie gaszonego reaganta i pozakomórkowe poziomy dopaminy w jądrze migdałowatym i jądrze półleżącym PNAS, 11 April 2000, 97 (8): 4321-4326
-
Ułatwienie zachowania seksualnego i zwiększony wypływ dopaminy w jądrze niedojrzałym samców szczurów po wywołanej D-amfetaminą uczuleniu behawioralnym Journal of Neuroscience, 1 January 1999, 19 (1): 456-463
-
NEUROSCIENCE: Zwracanie uwagi mózgu Nauka, 3 Październik 1997, 278 (5335): 35-37
-
Dopaminergiczne korelaty sytości-specyficzne sytości w przyśrodkowym kory przedczołowej i jądrze zwężeniu szczura Journal of Neuroscience, 1 October 1999, 19 (19): RC29