- 1Centro Interdisciplinario de Neurociencias de Valparaíso, Wydział Nauk, Universidad de Valparaíso, Valparaíso, Chile
- 2Departamento de Neurociencia, Facultad de Medicina, Universidad de Chile, Santiago, Chile
- 3Núcleo Milenio NUMIND Biologia zaburzeń neuropsychiatrycznych, Universidad de Valparaíso, Valparaíso, Chile
- 4Katedra Biologii Komórkowej i Molekularnej, Wydział Nauk Biologicznych, Pontificia Universidad Católica de Chile, Santiago, Chile
- 5Katedra Farmacji i Interdyscyplinarne Centrum Neuronauki, Wydział Chemii, Pontificia Universidad Católica de Chile, Santiago, Chile
Siła zachowań ukierunkowanych na cel jest regulowana przez neurony dopaminy śródmózgowia. Dysfunkcje obwodów dopaminergicznych obserwuje się w uzależnieniu od narkotyków i zaburzeniu obsesyjno-kompulsyjnym. Zachowanie kompulsywne jest cechą, która łączy oba zaburzenia, co jest związane ze zwiększoną neurotransmisją dopaminy. Aktywność neuronów dopaminy śródmózgowia jest regulowana głównie przez działanie homeostatyczne dopaminy poprzez receptory D2 (D2R), które zmniejszają odpalanie neuronów, a także syntezę i uwalnianie dopaminy. Transmisja dopaminy jest również regulowana między innymi przez heterologiczne układy neuroprzekaźników, takie jak układ opioidowy kappa. Znaczna część naszej obecnej wiedzy o systemie opioidowym kappa i jego wpływie na przekazywanie dopaminy pochodzi z przedklinicznych zwierzęcych modeli chorób mózgu. W 1988 r., Stosując mikrodializę mózgową, wykazano, że ostra aktywacja receptorów opioidowych Kappa (KOR) obniża poziom synaptyczny dopaminy w prążkowiu. Ten hamujący wpływ KOR przeciwstawia się ułatwianiu wpływu nadużywanych leków na uwalnianie dopaminy, co prowadzi do zaproponowania zastosowania agonistów KOR jako terapii farmakologicznej dla kompulsywnego przyjmowania leków. Co zaskakujące, 30 lat później proponuje się antagonistów KOR w leczeniu uzależnienia od narkotyków. Co mogło się wydarzyć w ciągu tych lat, które spowodowały drastyczną zmianę paradygmatu? Zebrane dowody sugerują, że wpływ KOR na poziomy synaptycznej dopaminy jest złożony, w zależności od częstotliwości aktywacji KOR i czasu z innymi przychodzącymi bodźcami do neuronów dopaminy, a także różnic płci i gatunków. W przeciwieństwie do jego ostrego działania, przewlekła aktywacja KOR wydaje się ułatwiać neurotransmisję dopaminy i zachowania zależne od dopaminy. Przeciwstawne działania wywierane przez ostrą kontra przewlekłą aktywację KOR były związane z początkowym efektem awersyjnym i opóźnionym nagradzaniem podczas narażenia na narkotyki. Zachowania kompulsywne indukowane przez powtarzaną aktywację D2R są również nasilane przez przedłużoną koaktywację KOR, która koreluje ze zmniejszonymi poziomami synaptycznymi dopaminy i uczulonym D2R. Zatem zależna od czasu aktywacja KOR wpływa bezpośrednio na poziomy dopaminy, wpływając na dostrajanie zachowań motywowanych. W tym przeglądzie analizuje się wkład systemu opioidowego kappa w korelacje dopaminergiczne zachowań kompulsywnych.
Wprowadzenie
Układ dopaminergiczny w zachowaniach kompulsywnych
Przymus jest niemożnością samodzielnego zaprzestania wykonywania nawykowej czynności ze znanym skutkiem, pomimo niekorzystnych konsekwencji ( Robbins i in., 2012 ). Zachowania kompulsywne są cechami charakterystycznymi dla zaburzeń obsesyjno-kompulsywnych (OCD) i uzależnienia od narkotyków, a także innych chorób psychicznych. Zachowanie sprawdzania jest bardzo powszechne w zaburzeniach ze spektrum obsesyjno-kompulsywnych i charakteryzuje się ciągłym powtarzaniem określonej rutyny w sposób stereotypowy lub rytualistyczny ( Williams i in., 2013 ). Szeroki zakres normalnych zachowań (np. sprawdzanie, sprzątanie, mycie rąk itp.) może przekształcić się w kompulsywne u pacjentów z OCD i ogólnie rzecz biorąc, powstaje w odpowiedzi na obsesyjne i niepokojące myśli wywołujące lęk. Podobnie, poszukiwanie i zażywanie narkotyków staje się kompulsywne u narkomanów. Podobnie jak w OCD, lęk odgrywa kluczową rolę w wywoływaniu kompulsywnego zażywania narkotyków u doświadczonych narkomanów. W obu przypadkach obserwuje się takie same zaburzenia przetwarzania nagrody i kary ( Figee i in., 2016 ), co skłoniło niektórych autorów do traktowania OCD jako uzależnienia behawioralnego ( Holden, 2001 ).
Jeden z możliwych mechanizmów prowadzących do kompulsywnych zachowań jest ujęty w teorii uzależnień o uwrażliwianiu na bodźce, która głosi, że podczas uzależnienia rozwija się wzmocniona motywacja („chcenie”) narkotyku bez wywoływania wzmocnionego efektu przyjemności („lubienia”) ( Berridge i in., 1989 ; Berridge i Robinson, 2016 ). Trwała uwrażliwienie obwodu nagrody/motywacji jest zaangażowana w indukcję uwrażliwienia na bodźce związane z poszukiwaniem narkotyku. Obwód nagrody/motywacji składa się z neuronów dopaminowych śródmózgowia istoty czarnej (SN) i brzusznego obszaru nakrywki (VTA), które odpowiednio kierują się do grzbietowej i brzusznej warstwy prążkowia. Neurony dopaminowe, które projektują do prążkowia brzusznego lub jądra półleżącego (NAc), tradycyjnie wiązano z zachowaniami zorientowanymi na cel, natomiast neurony dopaminowe, które projektują do prążkowia grzbietowego, wiązano z nabywaniem nawyków ( Everitt i Robbins, 2005 ; Wise, 2009 ; Yager i in., 2015 ; Volkow i in., 2017 ).
Uczulenie obwodu nagrody / motywacji obserwuje się u gryzoni jako stopniowy wzrost aktywności ruchowej wywołany powtarzanym podawaniem potencjalnie uzależniającej stałej dawki leku (Pierce i Kalivas, 1997; Robinson i Berridge, 2001). Uczulenie ruchowe jest znośnym zjawiskiem, ponieważ można je zaobserwować po tygodniach, miesiącach, a nawet roku po odstawieniu leku (Robinson i Berridge, 1993). Wcześniej zasugerowano, że uczulenie obwodu nagrody / motywacji przyczynia się do kompulsywnego poszukiwania narkotyków (Robinson i Berridge, 1993). W związku z tym uczulenie ruchowe ułatwia samodzielne podawanie kokainy w celu przywrócenia (De Vries i in., 2002). Ponadto szczury z rozszerzonym dostępem do samodzielnego podawania kokainy wykazują większą odpowiedź ruchową na kokainę niż szczury z ograniczonym dostępem (Ferrario i in., 2005). Ponadto zmiany neurochemiczne leżące u podstaw uczulenia narządu ruchu na psychostymulanty obserwuje się również w kompulsywnym poszukiwaniu leków (Steketee i Kalivas, 2011; Giuliano i in., 2019). Dane te potwierdzają zaproponowaną wcześniej zgodność między uczuleniem narządu ruchu a kompulsywnym poszukiwaniem leku obserwowanym u ludzi (Robinson i Berridge, 1993; Vanderschuren i Kalivas, 2000). Mechanicznie powtarzane podawanie leków uzależniających uwrażliwia mezolimbiczne obwody dopaminowe, zwiększając neurotransmisję dopaminergiczną. Psychostymulanty, takie jak kokaina lub amfetamina, które blokują błonę komórkową transportera dopaminy (DAT), indukują duży wzrost dopaminy w przestrzeni synaptycznej w prążkowiu i NAc, aktywując w ten sposób ruchSteketee i Kalivas, 2011). Podobnie jak w przypadku uzależnienia od narkotyków, uczulenie obwodu nagrody / motywacji dopaminy przyczynia się do zachowań kompulsywnych obserwowanych w OCD. Rzeczywiście, wielokrotna aktywacja receptorów dopaminy D2 (D2R) jest wystarczająca, aby wywołać uczulenie ruchowe i zachowanie sprawdzające zarówno u szczurów, jak i myszy (Szechtman i in., 1998; Szechtman i in., 1999; Sun i wsp., 2019). Powtarzane podawanie chinpirolu, agonisty D2R / D3R, jest przyjętym modelem OCD, ponieważ podsumowuje ważność twarzy, poprzez zwiększenie kompulsywnego sprawdzania i stereotypowych zachowań, trafności prognostycznej, co widać po spadku zachowań kompulsywnych po przewlekłym leczeniu wychwytem serotoniny inhibitory (SRI) i poprawność konstrukcji, ponieważ struktury mózgu zaangażowane w tym modelu są wspólne z tymi w patologii (Stuchlik i in., 2016; Szechtman i in., 2017). Podsumowując, powtarzana aktywacja transmisji dopaminy, albo przez mechanizmy pre-synaptyczne (uwalnianie dopaminy) lub post-synaptyczne (aktywacja D2R) prowadzi do uczulenia narządu ruchu i zachowań kompulsywnych.
System opioidowy kappa jest jednym z najbardziej przeważających systemów kontrolujących transmisję dopaminy w obwodzie nagrody / motywacji. Dowody wskazują, że transmisja opioidów kappa przeciwdziała wpływowi dopaminy; ostra aktywacja receptorów opioidowych kappa (KOR) przeciwdziała aktywności lokomotorycznej indukowanej przez psychostymulanty (Gray i in., 1999). I odwrotnie, powtarzana aktywacja KOR utrzymuje i poprawia kompulsywne i nawykowe poszukiwanie narkotyków (Koob, 2013). Spożywanie narkotyków powoduje nadużywanie homeopatycznego opioidu kappa, prawdopodobnie przyczyniając się do negatywnych stanów emocjonalnych dysforii (Koob, 2013), powodując kompulsywne używanie narkotyków (Chavkin i Koob, 2016). W rzeczywistości blokada KOR zapobiegała przywróceniu nikotyny przez stres, ale nie przez narkotyki (Jackson i in., 2013), kokaina (Beardsley i in., 2005) i etanol (Sperling i in., 2010). Zgodnie z tym odkryciem, blokada KOR przywraca zmiany dopaminergiczne w grzbietowo-bocznym prążkowiu szczurów uczulonych na amfetaminę, bez zmiany ich wzmocnionej odpowiedzi ruchowej na lek (Azocar i in., 2019). Zatem system KOR wydaje się zwiększać wzmocnienie ujemne, zwiększając wartość leku. W OCD wzmocnienie negatywne jest wywoływane przez obsesje, które wzmacniają dany przymus, aby uniknąć tej obsesji. Chociaż nie zostało to bezpośrednio przetestowane, wzmocnienie negatywne może odgrywać rolę w uczuleniu na chinpirol. Rzeczywiście, D2R są zaangażowane w generowanie wzmocnienia ujemnego. Na przykład u myszy pozbawionych długiej izoformy D2R nie opracowano unikania miejsca w obszarze sparowanym z wycofaniem morfiny (Smith i wsp., 2002) i powtarzane leczenie chinpirolem w okresie abstynencji przywraca poszukiwanie kokainy i heroiny w paradygmacie automatycznego podawania, efekt związany z wrażliwą ruchliwością chinpirolu (De Vries i in., 2002), co sugeruje wspólne mechanizmy działania uczulającego na psychostymulant i uczulenie na chinpirol. Ponadto wprowadzenie klatki domowej, ale nie nowej klatki, na arenę otwartego pola zmniejsza uczulenie narządu ruchu i kompulsywne zachowanie kontrolne (Szechtman i in., 2001), wskazując, że wskazówki bezpieczeństwa / znane mogą konkurować z negatywnymi wskazówkami środowiskowymi, które sprzyjają uczuleniu. Podobnie jak w przypadku uczulenia indukowanego psychostymulantem, powtarzana aktywacja KOR ułatwia uczulenie narządu ruchu (Escobar i in., 2017) i obowiązkowe sprawdzanie zachowania (Perreault i in., 2007) wywołane przez wielokrotne podawanie chinpirolu. Nie wiadomo, czy ten efekt wzmacniający jest konsekwencją wzmocnionego wzmocnienia ujemnego.
Dokładna analiza przeprowadzona ostatnio pokazuje, że wpływ układu kappa-opioidowego na przekaźnictwo dopaminergiczne jest złożony: zależy od zaangażowanego szlaku dopaminowego ( Margolis i in., 2006 ; Margolis i in., 2008 ) oraz od czasu między aktywacją receptora KOR a aktywacją receptora dopaminowego ( Chartoff i in., 2016 ). Zgodnie z tą złożonością, potencjalne terapeutyczne zastosowanie ligandów KOR jest szeroko dyskutowane . Zaproponowano, że agonista KOR może być klinicznie przydatny w fazie zażywania leku, osłabiając hiperdopaminergię wywołaną lekiem ( Shippenberg i in., 2007 ). Z drugiej strony, antagonista KOR może być przydatny w leczeniu zespołu odstawiennego wywołanego wzrostem ekspresji dynorfiny po wielokrotnym zażyciu leku ( Wee i Koob, 2010 ). W związku z tym zaproponowano, że częściowy agonista receptora KOR ( Béguin i in., 2012 ) może być opcją terapeutyczną w leczeniu zarówno kompulsywnego przyjmowania narkotyków, jak i objawów odstawienia u osób uzależnionych ( Chartoff i in., 2016 ; Callaghan i in., 2018 ). W niniejszym przeglądzie analizujemy zależną od czasu/kontekstu modulację korelatów dopaminergicznych uwrażliwienia behawioralnego i kompulsywności.
Anatomiczny i funkcjonalny przesłuch między opioidami Kappa a układami dopaminergicznymi w regionach prążkowia i śródmózgowia
Regiony prążkowia
Receptory KOR to receptory sprzężone z białkiem Gi/o, silnie ekspresjonowane w układzie dopaminowym śródmózgowia ( Mansour i in., 1996 ). Receptory te należą do rodziny receptorów opioidowych, na którą składają się receptory mu (MOR), delta (DOR) i kappa (KOR). Endogennymi agonistami tych receptorów są odpowiednio endorfiny, enkefalina i dynorfina. W prążkowiu dynorfina jest syntetyzowana przez neurony średniej wielkości (MSN) zawierające receptor dopaminowy D1 (D1R), których aksony nawrotowe aktywują receptory KOR z tych samych jąder ( Mansour i in., 1995 ). Zdjęcia mikroskopii elektronowej NAc szczura pokazują, że receptory KOR występują głównie w presynaptycznych strukturach zawierających DAT, podczas gdy mniejsza część receptorów KOR lokalizuje się na dendrytach w pozycji do DAT ( Svingos i in., 2001 ; Kivell i in., 2014 ). Badania immunofluorescencyjne charakteryzujące preparaty presynaptyczno-synaptosomalne z NAc pokazują, że receptory KOR i D2R preferencyjnie współistnieją w synaptosomach zawierających enzym syntetyzujący dopaminę, hydroksylazę tyrozynową (TH) ( Escobar i in., 2017 ). Ponadto receptory KOR występują obficie w ciałach komórek NAc i prążkowiu oraz kolokalizują się z receptorami D2R w subpopulacji komórek ( Escobar i in., 2017 ). Na podstawie badań genetycznych i molekularnych zasugerowano, że 20% całkowitego wiązania KOR w prążkowiu obserwuje się w zakończeniach DA ( Van't Veer i in., 2013 ). Co więcej, Tejeda i in. (2017) wykazali, że zarówno MSN D1R, jak i D2R ekspresują KOR, z większą preferencją dla MSN zawierających D1R ( Tejeda i in., 2017 ). Te dane anatomiczne wskazują, że KOR występują pre- i postsynaptycznie, regulując neurotransmisję dopaminy w obwodzie nagrody/motywacji.
Kilka podejść eksperymentalnych pokazuje, że aktywacja KOR hamuje uwalnianie dopaminy . Ostra aktywacja KOR przez ogólnoustrojowe wstrzyknięcie lub miejscową infuzję agonistów zmniejsza pozakomórkowe poziomy dopaminy w NAc ( Di Chiara i Imperato, 1988 ; Spanagel i in., 1992 ; Fuentealba i in., 2006 ) i prążkowiu grzbietowym ( Gehrke i in., 2008 ). Wspierając toniczne działanie hamujące KOR na neurotransmisję dopaminy, bezpośrednia infuzja długotrwałego i selektywnego antagonisty KOR nor-binaltorfiminy (nor-BNI) ( Broadbear i in., 1994 ) zwiększa podstawowe poziomy dopaminy w NAc ( Spanagel i in., 1992 ) i uwalnianie dopaminy w prążkowiu grzbietowym ( Azocar i in., 2019 ). Ostateczny dowód tonicznego hamowania dopaminy przez receptory KOR wykazano u myszy z wyłączonym genem KOR, u których stwierdzono zwiększone pozakomórkowe poziomy dopaminy w prążkowiu i naczyniu szpikowym ( Chefer i in., 2005 ). Mechanizmy odpowiedzialne za hamowanie uwalniania dopaminy przez receptory KOR nie zostały w pełni wyjaśnione. Wiadomo jednak, że aktywacja receptorów KOR prowadzi do wzrostu przewodnictwa jonów K+ i spadku przewodnictwa jonów Ca2+, indukując w ten sposób hiperpolaryzację komórek i blokując uwalnianie neuroprzekaźników pęcherzykowych ( Bruchas i Chavkin, 2010 ; Margolis i Karkhanis, 2019 ).
Ponadto , dane funkcjonalne in vitro i in vivo sugerują, że KOR modyfikują pozakomórkowe poziomy dopaminy poprzez modulację aktywności DAT . Na przykład, aktywacja KOR w komórkach EM4, które współekspresują KOR i DAT, prowadzi do zwiększonego wychwytu dopaminy mierzonego woltamperometrią ( Kivell i in., 2014 ). Analiza ex vivo również z wykorzystaniem woltamperometrii w zdezagregowanych tkankach, wykazała, że systemowe wstrzyknięcie agonisty KOR U-69593 zwiększyło wychwyt dopaminy w NAc ( Thompson i in., 2000 ). Podobny niedawny artykuł pokazuje, że nor-BNI blokuje wzrost wychwytu dopaminy w prążkowiu brzusznym i grzbietowym, indukowany przez ostre systemowe wstrzyknięcie MP1104, mieszanego agonisty receptora opioidowego Kappa/Delta ( Atigari i in., 2019 ). Niemniej jednak wpływ aktywacji KOR na wychwyt dopaminy nie został jeszcze w pełni wyjaśniony. Systemowe podawanie częściowego agonisty KOR, nalmefenu, zmniejszało wychwyt dopaminy w prążkowiu w sposób zależny od dawki, co zostało ilościowo określone za pomocą cyklicznej woltamperometrii szybkiego skanowania (FSCV) ( Rose i in., 2016 ). Przy użyciu mikrodializy bez przepływu sieciowego u dorosłych samców szczurów, zablokowaniu KOR towarzyszył wzrost frakcji ekstrakcji (Ed), która jest pośrednim pomiarem wychwytu dopaminy ( Chefer i in., 2006 ; Azocar i in., 2019 ), co sugeruje, że toniczna aktywacja KOR wywiera hamującą kontrolę na aktywność DAT (wychwyt dopaminy). Wyniki te podkreślają złożoną rolę endogennej aktywności KOR na wychwyt dopaminy w celu kontrolowania pozakomórkowych poziomów dopaminy. Metody o wyższej rozdzielczości czasowej, takie jak FSCV, nie wykazały wpływu KOR na wychwyt dopaminy ( Ebner i in., 2010 ; Ehrich i in., 2015 ; Hoffman i in., 2016 ), co sugeruje, że zwiększenie aktywności DAT w obszarach prążkowia przez KOR wymaga okresu inkubacji. Zwiększenie aktywności DAT za pomocą KOR można wyjaśnić wzrostem liczby DAT na błonach komórkowych wywołanym przez aktywację KOR, jak doniesiono w przypadku synaptosomów prążkowia i linii komórkowych ( Kivell i in., 2014 ).
Regiony śródmózgowia
Testy autoradiograficzne przeprowadzone w śródmózgowiu szczura wykazują znaczące wiązanie KOR na osi rostokaudalnej SN i VTA (Speciale i wsp., 1993). Z drugiej strony dane z mikroskopii elektronowej pokazują, że terminale zawierające dynorfiny synapsują bezpośrednio na dendrytach dodatnich TH w SN i VTA (Sesack i Pickel, 1992), co sugeruje, że KOR lokalizują się w przedziałach somatodendrytycznych neuronów dopaminowych. MSN zawierające prążkowia D1R są jednym z dynorfinowych sygnałów wejściowych do neuronów dopaminy śródmózgowia. Co ciekawe, blokowanie KOR nie modyfikuje działania hamującego D1R-MSN na neurony dopaminy VTA, co wskazuje, że w tym hamowaniu pośredniczy GABA (Edwards i in., 2017). KOR modulują odpowiedzi somatodendrytyczne neuronów śródmózgowia dopaminy. Badania elektrofizjologiczne pokazują, że aktywacja KOR w VTA hiperpolaryzuje i zmniejsza spontaniczną szybkość wyzwalania neuronów dopaminowych (Margolis i in., 2003). W konsekwencji infuzja agonistów KOR zmniejsza somatodendrytyczny wypływ dopaminy (Smith i wsp., 1992; Dalman i O'Malley, 1999). Jednak ten hamujący wpływ KOR na neurony dopaminy wydaje się być zależny od obwodu. Wlew agonistów opioidowych kappa do VTA zmniejsza uwalnianie dopaminy w środkowej korze przedczołowej (mPFC) (Margolis i in., 2006), ale nie w NAc (Devine i in., 1993; Margolis i in., 2006). Co więcej, Margolis i in. (2006) odkrył, że KOR hamują neurony dopaminy VTA, które rzutują na mPFC i jądro migdałkowo-podstawne, ale nie te, które rzutują na NAc. W tym samym roku Ford i in. (2006) wykazał, że zastosowanie agonistów KOR w kąpieli w mysich skrawkach VTA indukowało większy prąd zewnętrzny w neuronach dopaminy, które rzutują na NAc w porównaniu z tymi, które rzutują na bazolateralne ciało migdałowate, wskazując, że KOR wywierają większe hamowanie neuronów dopaminowych, które rzutują na NAc niż do ciała migdałowatego. Ponadto aktywacja KOR zmniejsza amplitudę pobudzenia (Margolis i in., 2005) i hamujący (Ford i in., 2007) prądy postsynaptyczne w neuronach dopaminy śródmózgowia. Różnice między gatunkami i złożonymi efektorami prowokacji VTA na mPFC i NAc (Van Bockstaele i Pickel, 1995; Carr i Sesack, 2000) utrudniają ustalenie, czy KOR wybiórczo hamują niektóre neuronalne populacje dopaminy w VTA. Niemniej jednak podsumowane tutaj dane wskazują, że KOR znajdują się w somie i terminalach neuronów dopaminowych, a także w wejściach, które je regulują, dzięki czemu są doskonale ustawione do kontrolowania aktywności synaptycznej neuronów dopaminy śródmózgowia.
Rola KOR w kontrolowaniu neurotransmisji dopaminowej w uczuleniu i zachowaniach kompulsywnych wywołanych przez psychostymulatory
Uzależnienie od narkotyków to proces, który początkowo obejmuje impulsywne poszukiwanie narkotyków związane z ich pozytywnymi efektami wzmacniającymi. Z drugiej strony, kompulsywność jest cechą osobowości obserwowaną u osób uzależnionych od narkotyków. Zaproponowano kilka neuroadaptacji w szlakach dopaminergicznych, aby wyjaśnić kompulsywne poszukiwanie narkotyków i ich przyjmowanie po powtarzającej się ekspozycji na narkotyki ( Everitt i Robbins, 2005 ; Koob i Volkow, 2016 ). Jedną z proponowanych hipotez napędzających kompulsywne przyjmowanie narkotyków jest uwrażliwienie na ich negatywne efekty wzmacniające ( Koob, 2013 ). Hamująca kontrola układu opioidowego kappa nad uwalnianiem dopaminy może przyczyniać się do negatywnych właściwości wzmacniających narkotyków. Jednak konsekwencje aktywacji KOR na neurotransmisję dopaminy i kompulsywne poszukiwanie narkotyków wydają się być złożone i pozornie sprzeczne. Rzeczywiście, uwalnianie dopaminy wywołane amfetaminą i kokainą jest osłabiane przez jednoczesne podawanie agonistów KOR ( Heidbreder i Shippenberg, 1994 ; Maisonneuve i in., 1994 ; Thompson i in., 2000 ), a nawet zmniejsza samopodawanie kokainy ( Negus i in., 1997 ). Co więcej, KOR wywierają hamujące sprzężenie zwrotne na uwalnianie dopaminy w szlaku mezolimbicznym w odpowiedzi na długotrwałą aktywację postsynaptycznego receptora D1R, co ma miejsce przy powtarzającej się ekspozycji na psychostymulanty ( Cole i in., 1995 ; Nestler, 2001 ). Paradoksalnie, aktywacja KOR może również ułatwiać uwalnianie dopaminy w szlaku nagrody/motywacji ( Fuentealba i in., 2006 ; Fuentealba i in., 2007 ) i spożycie psychostymulantów ( Wee i in., 2009 ). Fuentealba i in. (2007) wykazali, że po czterech dniach podawania U69593, agonisty KOR, zwiększyło się uwalnianie dopaminy indukowane amfetaminą w NAc. Niedawno wykazano, że blokowanie KOR odwraca zmiany w uwalnianiu i wychwycie dopaminy w prążkowiu grzbietowym, które mają miejsce podczas uwrażliwienia lokomotorycznego indukowanego amfetaminą ( Azocar i in., 2019 ). Ogólnie rzecz biorąc, dane te sugerują, że aktywacja KOR może również przyczyniać się do pozytywnych właściwości wzmacniających narkotyków ( Chartoff i in., 2016 ).
Ponadto, aktywacja KORs wydaje się również przyczyniać do kompulsywnego poszukiwania narkotyków; blokada KORs zmniejsza spożycie kokainy ( Wee i in., 2009 ), heroiny ( Schlosburg i in., 2013 ) i metamfetaminy ( Whitfield i in., 2015 ) u szczurów z nieograniczonym dostępem do narkotyku ( Wee i in., 2009 ). Ten efekt jest również widoczny w przypadku poszukiwania narkotyków wywołanego stresem. Na przykład myszy z wyłączonym genem KOR nie wykazywały preferencji miejsca dla kokainy po stresie wymuszonego pływania ( McLaughlin i in., 2006a ). Blokada KORs osłabia preferencję miejsca dla nikotyny wywołaną ekspozycją na stres wymuszonego pływania ( Smith i in., 2012 ). Co ciekawe, blokowanie KOR osłabia poszukiwanie kokainy i nikotyny wywołane stresem, ale nie wpływa na poszukiwanie wywołane wyzwaniem narkotykowym ( Beardsley i in., 2005 ; Jackson i in., 2013 ). Ten efekt KOR ułatwiający wywołany stresem wydaje się być pośredniczony przez obwód nagrody/motywacji ( Shippenberg i in., 2007 ; Wee i Koob, 2010 ). W eleganckim badaniu przeprowadzonym przez dr Kauer i jej grupę wykazano, że blokowanie KOR w VTA, zarówno przed, jak i po ostrym stresie, hamuje ponowne poszukiwanie kokainy, efekt związany z ratowaniem długotrwałego potencjału synaps hamujących w neuronach dopaminowych ( Graziane i in., 2013 ; Polter i in., 2014 ).
Ułatwianie przyjmowania psychostymulantów wywierane przez receptory KOR wydaje się zależeć od okna czasowego dotyczącego ekspozycji na lek. Podanie agonisty receptora KOR U50488 na 1 godzinę przed ekspozycją na kokainę potęguje zarówno preferencję miejsca kokainy, jak i względne uwalnianie dopaminy wywołane przez kokainę w jądrze półleżącym (NAc), podczas gdy przeciwne efekty obserwuje się po podaniu na 15 minut przed ( McLaughlin i in., 2006a ; Ehrich i in., 2014 ). Wykorzystując samostymulację wewnątrzczaszkową, Chartoff i in. (2016) zaobserwowali, że agonista receptora KOR Salvinorin A ma początkowy efekt awersyjny i opóźniony efekt nagradzający, którym towarzyszy odpowiednio spadek i wzrost stymulowanego uwalniania dopaminy w jądrze półleżącym (NAc). Wszystkie te dane wskazują na zależny od czasu wpływ aktywacji KOR na nagradzające właściwości kokainy i wskazują, że aktywacja KOR wywołana stresem odgrywa kluczową rolę w rozwoju kompulsywnego poszukiwania narkotyków.
Indukowane chinpirolem uczulenie ruchowe i kompulsywne zachowanie
Fakt, że układ dopaminowy bierze udział w generowaniu sensytyzacji i kompulsywności, jest wzmocniony przez zachowanie obserwowane u gryzoni leczonych agonistą receptora D2R, chinpirolem. W skrócie, receptory D2R to receptory sprzężone z receptorem Gi, szeroko obecne w obwodzie nagrody/motywacji; są one obecne somatodendrytycznie i na zakończeniach aksonów neuronów dopaminowych ( Sesack i in., 1994 ), a ich aktywacja zmniejsza pozakomórkowe poziomy dopaminy ( Imperato i Di Chiara, 1988 ). W prążkowiu receptory D2R są również zlokalizowane postsynaptycznie na średnich neuronach kolczastych ( Sesack i in., 1994 ), a ich aktywacja hamuje pośrednią ścieżkę umożliwiającą aktywność lokomotoryczną.
Dr Henry Szechtman rozpoczął badania nad wpływem chinpirolu na zachowanie szczurów pod koniec lat 1980. XX wieku. Wstępne wyniki wykazały, że ostre podanie chinpirolu ma zależny od dawki wpływ na aktywność lokomotoryczną. W niskich dawkach (0.03 mg/kg) zmniejsza aktywność lokomotoryczną, natomiast w wyższych dawkach (>0.5 mg/kg) ją zwiększa ( Eilam i Szechtman, 1989 ). Efekty te są związane z aktywacją odpowiednio presynaptycznych receptorów D2 o wysokim powinowactwie i postsynaptycznych receptorów D2 o niskim powinowactwie ( Usiello i in., 2000 ). Nieoczekiwanie, wielokrotne (co drugi dzień) podawanie chinpirolu indukuje stopniowy i utrzymujący się wzrost aktywności lokomotorycznej, przypominający uwrażliwienie na bodźce psychostymulujące ( Szesztman i in., 1993 ; Szechtman i in., 1994 ). Wykazano, że efekt uwrażliwienia na bodźce lokomotoryczne zależy od receptorów D2R, ponieważ u myszy z niedoborem tego receptora nie rozwija się uwrażliwienie na bodźce lokomotoryczne chinpirolu ( Escobar i in., 2015 ).
Na początku lat 90. Szechtman i Eilam donosili, że wraz z uczuleniem narządów ruchu u szczurów rozwinęło się stereotypowe zachowanie, które jest wzmacniane po każdym podaniu chinpirolu (Eilam i Szechtman, 1989; Szechtman i in., 1993). Obecnie wielokrotne podawanie chinpirolu jest sprawdzonym modelem OCD (Szechtman i in., 1999; Szechtman i in., 2001; Eilam i Szechtman, 2005; Stuchlik i in., 2016; Szechtman i in., 2017), w oparciu o spostrzeżenie, że zachowanie szczurów staje się coraz bardziej ustrukturyzowane i nieelastyczne, co przypomina rytualne zachowanie charakterystyczne dla zachowania nałogowego sprawdzania (Szechtman i in., 1998; Szechtman i in., 2017). Ostatnie badania pokazują, że powtarzany chinpirol wywołuje również zachowania kompulsywne u myszy, takie jak kompulsywne sprawdzanie (Sun i wsp., 2019), sztywność behawioralna i kompulsywne żucie (Asaoka i in., 2019), ten ostatni został cofnięty przez blokadę D2R w prążkowiu, co dodatkowo potwierdza, że wielokrotna aktywacja D2R jest konieczna do wywołania zachowań kompulsywnych. Razem dane wskazują na kluczową rolę D2R w szlakach dopaminy śródmózgowia w indukowaniu uczulenia narządu ruchu i kompulsywności. Powtarzane podawanie chinpirolu powoduje stereotypowe zachowanie wywołane kokainą (Thompson i in., 2010) i efekty ruchowe amfetaminy (Cope i wsp., 2010), wzmacniając ideę, że aktywacja D2R leży u podstaw uczulenia indukowanego psychostymulantem i sugeruje wspólny mechanizm między chinpirolem i uczuleniem indukowanym psychostymulantami. Co ciekawe, efekt uczulający powtarzanej aktywacji D2R wydaje się być silniejszy niż efekt wywołany przez psychostymulanty, ponieważ u każdego szczura leczonego chinpirolem występuje uczulenie ruchowe (Escobar i in., 2015), podczas gdy około sześćdziesiąt procent szczurów uczula na amfetaminę (Escobar i in., 2012; Casanova i in., 2013).
Uczulenie behawioralne wywołane przez powtarzającą się aktywację D2Rs wiąże się z adaptacjami w obwodzie nagrody/motywacji. Szczury uwrażliwione chinpirolem mają niższy ton dopaminergiczny w NAc, obserwowany jako zmniejszone podstawowe ( Koeltzow i in., 2003 ) oraz stymulowane toniczne i fazowe uwalnianie dopaminy ( Escobar i in., 2015 ), co wskazuje na zmniejszoną zdolność uwalniania dopaminy przez obwód dopaminowy śródmózgowia. Synaptyczne poziomy dopaminy w NAc są kontrolowane przez aktywność zarówno DAT, jak i aktywność neuronów dopaminowych ( Goto i Grace, 2008 ), która in vivo składa się z wyładowań tonicznych i seryjnych ( Wilson i in., 1977 ; Grace i Bunney, 1980 ). Poprzednie raporty pokazują, że szczury uwrażliwione chinpirolem wykazują mniejszą liczbę neuronów dopaminowych w wyładowaniach tonicznych i seryjnych w VTA ( Sesia i in., 2013 ). Łącznie te dane wskazują, że spadek uwalniania dopaminy obserwowany po uwrażliwieniu na chinpirol jest wynikiem spadku ogólnej aktywności neuronów dopaminowych. Zachowania kompulsywne i uwrażliwiona aktywność lokomotoryczna indukowane wielokrotnym leczeniem chinpirolem mogą być konsekwencją uwrażliwienia receptorów D2, spowodowanego zmniejszeniem napięcia dopaminergicznego w NAc. Rzeczywiście, u szczurów uwrażliwionych na chinpirol obserwuje się wzrost wiązania receptorów dopaminowych D2 ( Culver i in., 2008 ) oraz wzrost powinowactwa tych receptorów ( Perreault i in., 2007 ), co potwierdza tę hipotezę.
Interakcje KOR-dopamina w zachowaniach kompulsyjnych wywołanych chinpirolem
Wstępne badania dotyczące roli KOR w zachowaniach kompulsywnych wywołanych przez D2R również pochodziły z laboratorium Szechtmana. Grupa ta badała jednoczesne podawanie agonisty KOR U69593 z chinpirolem na aktywność lokomotoryczną. Dokładniej, autorzy podawali szczurom podskórne iniekcje mieszaniny U69593 i chinpirolu, aż do wykonania 8 do 10 iniekcji. W przeciwieństwie do hipolokomotorycznego efektu samego U69593, hiperlokomocję obserwowano po jednoczesnym podaniu z niskimi (presynaptycznymi) i wysokimi (postsynaptycznymi) dawkami chinpirolu. U69593 zmienił hipolokomotoryczny efekt presynaptycznej dawki chinpirolu na hiperlokomocję i nasilił hiperlokomotoryczny efekt postsynaptycznej dawki chinpirolu ( Perreault i in., 2006 ). Współaktywacja KOR przyspieszyła również indukcję sensytyzacji lokomotorycznej i wzmocniła efekt aktywacji D2R, ponieważ maksymalna lokomocja osiągnięta dzięki podwójnemu leczeniu powiela efekt lokomotoryczny wywołany przez sam chinpirol ( Perreault i in., 2006 ; Escobar i in., 2017 ). Współaktywacja KOR przyspiesza również nabywanie kompulsywnego zachowania sprawdzającego ( Perreault i in., 2007 ). Te potencjalizujące efekty KOR na zachowania wywołane chinpirolem wymagają powtarzanej aktywacji KOR. W rzeczywistości ostre wstrzyknięcie agonisty KOR U69593 nie zmodyfikowało dalej aktywności lokomotorycznej u szczurów uwrażliwionych chinpirolem ( Escobar i in., 2017 ). Mechanizm potencjalizacji przez KOR sensytyzacji wywołanej przez D2R jest nieznany. Jedną z możliwości jest to, że endogenny układ opioidowy kappa sam pośredniczy w uwrażliwianiu zależnym od receptora D2R. Jednakże możliwość ta została odrzucona, ponieważ wykazano, że wstępne podanie norBNI nie modyfikowało uwrażliwienia lokomotorycznego na chinpirol, co sugeruje, że dynorfina nie jest uwalniana w następstwie aktywacji receptora D2R ( Escobar i in., 2017 ). Dane te nie wykluczają, że dynorfina może odgrywać rolę w uwrażliwianiu na zachowania kompulsywne, na przykład stres indukuje uwalnianie dynorfiny i aktywację receptorów KOR, co sprzyja zachowaniom kompulsywnym ( McLaughlin i in., 2003 ; McLaughlin i in., 2006a ; McLaughlin i in., 2006b ).
Przesłuch między receptorami D2R i KOR jest złożony i wydaje się zależeć od tego, czy aktywacja obu receptorów jest jednoczesna, czy też rozdzielona czasowo. Dane anatomiczne wskazują, że przesłuch między receptorami D2R i KOR może występować presynaptycznie w aksonach i somie neuronów dopaminowych, a także postsynaptycznie w neuronach MSN prążkowia. Chociaż nie wyklucza to roli receptorów KOR zlokalizowanych na aksonach innych układów neurochemicznych, dane anatomiczne silnie wskazują na bezpośrednią rolę receptorów KOR w regulacji receptorów D2R. Aktywacja receptorów KOR, zarówno ostra, jak i powtarzająca się, zmniejsza hamujące działanie receptorów D2R na neurony dopaminowe. Badania elektrofizjologiczne wykazały, że ostra aktywacja KOR w neuronach dopaminowych VTA i SN hamuje hamujący prąd postsynaptyczny zależny od D2R, efekt mediowany przez mechanizmy pre- i postsynaptyczne, ponieważ KOR zmniejsza uwalnianie dopaminy, a dynorfina blokuje hamujący efekt dopaminy podawanej w kąpieli ( Ford i in., 2007 ). Badania neurochemiczne wykazały, że powtarzająca się aktywacja KOR blokuje indukowane przez D2R hamowanie uwalniania dopaminy w NAc ( Fuentealba i in., 2006 ). Ponadto, jednoczesna ostra aktywacja D2R i KOR zmniejsza hamowanie uwalniania dopaminy w NAc w porównaniu z efektem każdego receptora osobno ( Escobar i in., 2017 ). Zatem presynaptyczne KOR nie działają addytywnie ani synergicznie z presynaptycznymi D2R, wręcz przeciwnie, KOR albo hamują, albo okludują efekt hamujący D2R. Mechanizm ten może wyjaśniać efekt aktywujący lokomotorykę ostrej dawki agonistów KOR podawanej jednocześnie z małą dawką chinpirolu ( Perreault i in., 2006 ).
Niedawne badanie pokazuje, że aktywacja KOR w VTA pośredniczy w kompulsywnym zachowaniu mierzonym jako hamowanie behawioralne i zakopywanie kulek ( Abraham i in., 2017 ), wzmacniając ideę, że aktywacja KOR jest rzeczywiście wyzwalaczem kompulsywności. Dane opublikowane przez Margolis i in. (2006 ; 2008) wskazują, że interakcja KOR i D2R powinna mieć miejsce na neuronach dopaminowych ukierunkowanych na mPFC ( Margolis i in., 2006 ; Margolis i in., 2008 ). Niemniej jednak, Ford i in. (2006 ; 2007) odkryli, że hamowanie przez KOR IPSC pośredniczonego przez D2R ma miejsce na neuronach dopaminowych ukierunkowanych na NAc ( Ford i in., 2006 ; Ford i in., 2007 ). Łącznie te dane wskazują, że interakcja KOR z D2R w przedziale somatodendrytycznym neuronów dopaminowych może wynikać z przesłuchu w tym samym neuronie dopaminowym. Nadal nie wiadomo, czy dzieje się to w projekcjach mezolimbicznych, czy mezokortykalnych.
Co godne uwagi, KOR został wykryty w MSN NAc ( Escobar i in., 2017 ; Tejeda i in., 2017 ), co wskazuje, że potencjalizacja kompulsywnego zachowania wywołanego przez D2R może również wynikać z bezpośredniego działania na komórki docelowe neuronów dopaminowych. W tym względzie warto wspomnieć, że wielokrotne podawanie U69593 zwiększa ilość D2Rs w stanie wysokiego powinowactwa ( Perreault i in., 2007 ). Dane neurochemiczne wskazują, że obniżone pozakomórkowe poziomy dopaminy są związane z uwrażliwieniem D2Rs. Współaktywacja KORs nie obniża dalej pozakomórkowych poziomów dopaminy w NAc, które już zostały obniżone przez wielokrotną aktywację D2Rs ( Escobar i in., 2017 ), co wyklucza rolę presynaptycznych KORs przyspieszających lub potencjalizujących uwrażliwienie D2Rs w NAc poprzez ten mechanizm. Zatem receptory KOR uruchamiają powolne mechanizmy molekularne, które dodatkowo uwrażliwiają neurochemiczne i behawioralne efekty receptorów D2, co sugeruje, że nasilenie uwrażliwienia lokomocyjnego może wynikać z adaptacyjnego efektu postsynaptycznego, a nie presynaptycznego. W związku z tym powtarzająca się aktywacja receptorów KOR może wywołać zahamowanie pośredniej drogi prążkowia D2, zmieniając równowagę D1R/D2R na D1R, indukując kompulsywność ( ryc. 1 ).
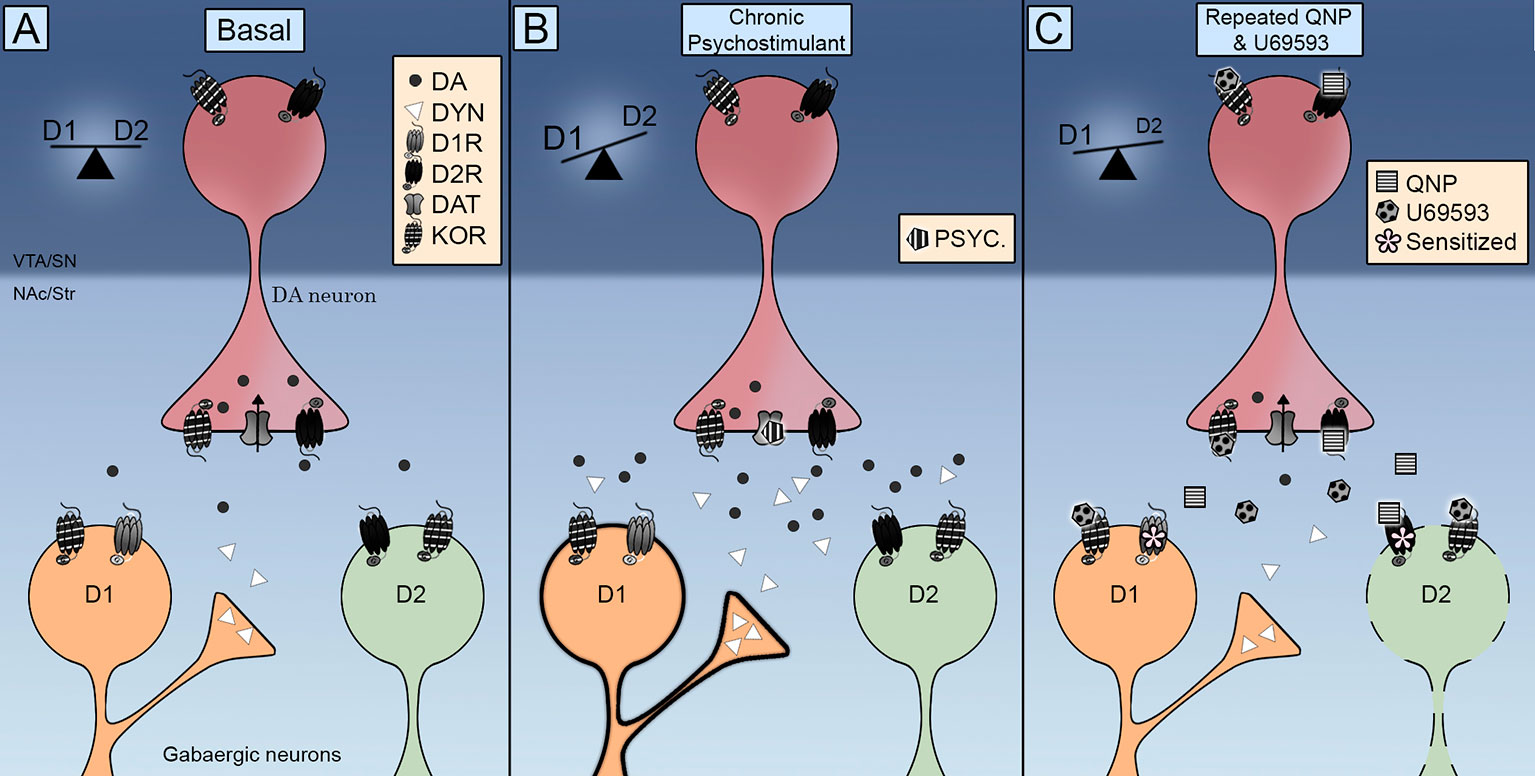 Rysunek 1 Schemat integracji receptorów opioidowych Kappa (KOR) na bezpośrednich (D1R) i pośrednich (D2R) przejściach prążkowia. () KOR są umiejscowione przedsynaptycznie na terminalach dopaminowych i postsynaptycznie w średnich neuronach (MSN). Jego aktywacja kontroluje poziomy zewnątrzkomórkowe dopaminy, a jego lokalizacja promuje interakcję z transporterem dopaminy (DAT) i receptorami dopaminy D2. (B) Powtarzającej się ekspozycji na psychostymulant towarzyszy wzrost zarówno poziomu zewnątrzkomórkowego dopaminy, jak i dynorfiny. Aktywacja receptorów D1 i D2 przełącza równowagę na bezpośredni szlak D1R, promując uczulenie ruchowe. (DO) Jednoczesne podawanie chinpirolu i U69593 towarzyszy obniżeniu poziomu zewnątrzkomórkowego dopaminy. Jednoczesna aktywacja receptorów KOR i D2 osłabia pośredni szlak D2 indukując kompulsywne zachowanie.
Różnice płciowe interakcji KOR-dopamina w zachowaniach kompulsywnych
Badania kliniczne wykazały różnice między płciami w zakresie zachowań kompulsywnych, w tym kompulsywnego poszukiwania narkotyków. U mężczyzn obserwuje się wcześniejsze występowanie objawów OCD niż u kobiet ( Mathis i in., 2011 ), przy czym u kobiet częściej występują objawy związane z zanieczyszczeniem i czyszczeniem ( Labad i in., 2008 ). Jeśli chodzi o różnice między płciami w uzależnieniu od narkotyków, dowody kliniczne wskazują, że chociaż używanie narkotyków jest bardziej powszechne wśród mężczyzn, kobiety wykazują szybszy postęp w kompulsywnym poszukiwaniu narkotyków niż mężczyźni ( Hernandez-Avila i in., 2004 ; Fattore i Melis, 2016 ).
Ostatnio dowody przedkliniczne silnie podkreśliły neurobiologiczne podstawy leżące u podstaw różnic płciowych w nadużywaniu narkotyków obserwowanych w badaniach klinicznych ( Becker i Chartoff, 2019 ). Wczesne obserwacje z wykorzystaniem mikrodializy bez przepływu netto wykazały, że pozakomórkowe stężenie dopaminy w prążkowiu grzbietowym zmienia się w trakcie cyklu rujowego, osiągając wyższe poziomy w proestrus i estrus w porównaniu z diestrus. Ponadto, podczas gdy owariektomia zmniejsza pozakomórkowe stężenie dopaminy w prążkowiu u samic szczurów, kastracja samców szczurów nie modyfikuje pozakomórkowego stężenia dopaminy w prążkowiu ( Xiao i Becker, 1994 ), co sugeruje ważną rolę hormonów jajnikowych w aktywności dopaminy. Ponadto hormony żeńskie regulują odpowiedź na psychostymulanty. Wczesne eksperymenty in vitro wykazały, że estradiol plus progesteron przywracają indukowane amfetaminą uwalnianie dopaminy z tkanki prążkowia pobranej od samic szczurów po owariektomii ( Becker i Ramirez, 1981 ). Niedawno przeprowadzone badania z wykorzystaniem woltamperometrii cyklicznej z szybkim skanowaniem wykazały, że u kobiet obserwuje się większe uwalnianie i wychwyt dopaminy stymulowanej elektrycznie w porównaniu z mężczyznami ( Walker i in., 2000 ). Te różnice w neurotransmisji dopaminy między płciami mogą tłumaczyć obserwowane u kobiet większe poszukiwanie kokainy i amfetaminy ( Roberts i in., 1989 ; Cox i in., 2013 ).
Regulacja KOR na zewnątrzkomórkowym poziomie dopaminy również wykazuje różnice płciowe ( Chartoff i Mavrikaki, 2015 ). Wykorzystując samostymulację wewnątrzczaszkową i woltamperometrię cykliczną, Conway i in. (2019) wykazali, że niższa wrażliwość na ostry efekt anhedoniczny agonisty KOR obserwowana u samic szczurów w porównaniu do samców szczurów, wiąże się ze osłabionym hamowaniem stymulowanego uwalniania dopaminy w NAc ( Conway i in., 2019 ). Zasugerowano, że estradiol przyczynia się do stępionego hamowania uwalniania dopaminy obserwowanego u samic szczurów po aktywacji KOR ( Abraham i in., 2018 ). Podczas gdy interakcja między KOR a sygnalizacją dopaminy była badana u samców ( Tejeda i Bonci, 2019 ), brakuje badań nad tą interakcją i jej wpływem na proces uzależnienia u samic ( Chartoff i Mavrikaki, 2015 ). U samic szczurów ostre podanie agonisty receptora KOR, U69593, osłabiło hiperlokomocję wywołaną kokainą, zarówno u szczurów kontrolnych, jak i po owariektomii. Co ciekawe, wielokrotne podanie U69593 osłabiło hiperlokomocję wywołaną kokainą w sposób zależny od estradiolu ( Puig-Ramos i in., 2008 ). Dane te sugerują, że estradiol inicjuje działanie receptora KOR u samic szczurów, co może być związane z różnicami płci w reakcji na stres ( Puig-Ramos i in., 2008 ). Nierozstrzygnięte pozostaje pytanie, czy u samic szczurów wielokrotna aktywacja receptorów KOR ułatwia uwalnianie dopaminy z prążkowia, tak jak obserwowano to u samców.
Chociaż obserwuje się ułatwienie uwalniania dopaminy indukowanej psychostymulantami u samic szczurów w porównaniu z samcami, różnice płciowe w mechanizmach dopaminowych leżących u podstaw uwrażliwienia lokomotorycznego na amfetaminę nie zostały w pełni wyjaśnione ( Becker, 1999 ). Powtarzająca się ekspozycja na amfetaminę indukuje większą aktywność lokomotoryczną zarówno u młodych ( Mathews i McCormick, 2007 ), jak i dorosłych samic szczurów ( Milesi-Hallé i in., 2007 ), przy czym młode samice szczurów wykazują silniejszą uwrażliwienie lokomotoryczne po wielokrotnej ekspozycji na amfetaminę. Aktywacja receptora D2 u noworodków potęgowała uwrażliwienie behawioralne indukowane amfetaminą tylko u samic szczurów ( Brown i in., 2011 ). Jak wspomniano wcześniej, zaobserwowano, że u samców szczurów powtarzająca się ekspozycja na agonistę D2 indukuje uwrażliwienie lokomotoryczne i zachowania kompulsywne ( Dvorkin i in., 2006 ). Ponadto, współaktywacja KOR potęguje uwrażliwienie lokomotoryczne indukowane przez powtarzającą się ekspozycję na chinpirol, ułatwiając hamującą kontrolę receptorów D2 nad uwalnianiem DA w NAc ( Escobar i in., 2017 ). Różnice płciowe, takie jak obserwowana mniejsza wrażliwość na hamujący wpływ KOR na uwalnianie dopaminy u samic ( Conway i in., 2019 ), mogą wyjaśniać zróżnicowany udział KOR w kompulsywnym poszukiwaniu narkotyków.
wnioski
W jaki sposób receptory KOR modulują sygnalizację dopaminową, aby wykształcić motywowane zachowania i kiedy prowadzi to do uwrażliwionego zachowania kompulsywnego? Dane anatomiczne pokazują, że receptory KOR są doskonale przystosowane do kontrolowania aktywności synaptycznej neuronów dopaminowych śródmózgowia. Dane funkcjonalne wskazują, że receptory KOR kontrolują funkcjonowanie receptorów DAT i D2R, a także częstotliwość aktywacji neuronów dopaminowych. Wstępne dowody wskazujące na to, że ostra aktywacja receptorów KOR zmniejsza uwalnianie dopaminy indukowane przez narkotyki, zostały uzupełnione danymi wskazującymi, że powtarzająca się aktywacja receptorów KOR ułatwia uwalnianie dopaminy i kompulsywne poszukiwanie narkotyków. Sygnalizacja dopaminowa równoważy bezpośrednie i pośrednie szlaki wyjściowe z obszarów prążkowia ( ryc. 1A ). Zarówno przewlekła stymulacja psychostymulantami, które zwiększają uwalnianie dopaminy aktywując zarówno D1R, jak i D2R ( Rysunek 1B ), jak i chinpirol, który aktywuje tylko D2R ( Rysunek 1C ), powoduje uwrażliwienie lokomotoryczne i zachowania kompulsywne poprzez osłabioną pośrednią drogę D2R, przełączając w ten sposób równowagę na bezpośrednią drogę D1R. Przekaźnictwo KOR jest wzmocnione podczas przewlekłego przyjmowania psychostymulantów poprzez wzrost dynorfiny w neuronach prążkowia D1 ( Rysunek 1B ). Wzmocnione przekazywanie KOR jest emulowane w farmakologicznym modelu OCD poprzez podawanie U69593. Ta jednoczesna aktywacja KOR dodatkowo osłabia pośrednią drogę D2 ( Rysunek 1C ). Należy przeprowadzić dalsze badania w celu pełnego wyjaśnienia konsekwencji aktywacji KOR na aktywność DAT, zrozumienia roli endogennego układu KOR w kompulsywności wywołanej chinpirolem oraz określenia wpływu układu KOR na różnice płciowe obserwowane w zachowaniach kompulsywnych.
Autorskie Wkłady
AE, MA i JF przyczyniły się do powstania manuskryptu. AE i JF napisali pierwszy szkic manuskryptu przy udziale MA. MA i JC przyczynili się do krytycznej recenzji i edycji manuskryptu. Wszyscy autorzy zatwierdzili go do publikacji.
Finansowanie
Praca autorów cytowanych w tym przeglądzie została poparta numerami grantów FONDECYT: 1110352 i 1150200 dla MA; 1141088 na rzecz JF; Dotacja DIPOG 391340281 dla JF; FONDECYT Stypendysta podoktorancki 3170497 do JC i 3190843 do AE.
Konflikt interesów
Autorzy oświadczają, że badanie zostało przeprowadzone przy braku jakichkolwiek powiązań handlowych lub finansowych, które mogłyby być interpretowane jako potencjalny konflikt interesów.
Redaktor ds. Obsługi organizuje obecnie temat badań z jednym z autorów JF i potwierdza brak jakiejkolwiek innej współpracy.
Referencje
Abraham, AD, Fontaine, HM, Song, AJ, Andrews, MM, Baird, MA, Kieffer, BL i wsp. (2017). Aktywacja receptora opioidowego kappa w neuronach dopaminowych zaburza hamowanie behawioralne. Neuropsychopharmacology 43 (2), 362–372. doi: 10.1038/npp.2017.133
Abraham, AD, Schattauer, SS, Reichard, KL, Cohen, JH, Fontaine, HM, Song, AJ i in. (2018). Regulacja estrogenowa GRK2 inaktywuje sygnalizację receptora opioidowego kappa, pośredniczącą w analgezji, ale nie w awersji. J. Neurosci. 38 (37), 8031–8043. doi: 10.1523/JNEUROSCI.0653-18.2018
Asaoka, N., Nishitani, N., Kinoshita, H., Nagai, Y., Hatakama, H., Nagayasu, K. i in. (2019). Antagonista receptora adenozyny A2A łagodzi liczne objawy nawracającej psychozy wywołanej chinpirolem. eNeuro 6 (1), 1–16. ENEURO.0366-18.2019. doi: 10.1523/ENEURO.0366-18.2019
Atigari, DV, Uprety, R., Pasternak, GW, Majumdar, S., Kivell, BM (2019). MP1104, mieszany agonista receptora opioidowego kappa-delta, wykazuje właściwości przeciwkokainowe i powoduje mniej działań niepożądanych u szczurów. Neuropharmacology 150, s. 217–228. doi: 10.1016/j.neuropharm.2019.02.010
Azocar, VH, Sepúlveda, G., Ruiz, C., Aguilera, C., Andrés, ME, Fuentealba, JA (2019). Blokowanie receptora opioidowego kappa odwraca zmiany w dynamice dopaminy w prążkowiu grzbietowo-bocznym podczas uwrażliwienia na amfetaminę. J. Neurochem. 148, 348–358. doi: 10.1111/jnc.14612
Béguin, C., Potuzak, J., Xu, W., Liu-Chen, LY, Streicher, JM, Groer, CE i in. (2012). Różnicowe właściwości sygnalizacyjne na receptorze opioidowym kappa 12-epi-salwinoryny A i jej analogów. Bioorg. Med. Chem. Łotysz. 15;22 (2), 1023–1026. doi: 10.1016/j.bmcl.2011.11.128
Beardsley, PM, Howard, JL, Shelton, KL, Carroll, FI (2005). Zróżnicowane efekty nowego antagonisty receptora opioidowego kappa, JDTic, na powrót do poszukiwania kokainy wywołanego bodźcami stresowymi w postaci wstrząsu elektrycznego w porównaniu z bodźcami inicjującymi po kokainie oraz jego działanie przeciwdepresyjne u szczurów. Psychopharmacol. (Berl) 183, 118–126. doi: 10.1007/s00213-005-0167-4
Becker, JB, Chartoff, E. (2019). Różnice płciowe w mechanizmach neuronalnych pośredniczących w nagradzaniu i uzależnieniu. Neuropsychopharmacology 44, 166–183. doi: 10.1038/s41386-018-0125-6
Becker, JB, Ramirez, VD (1981). Różnice płciowe w uwalnianiu katecholamin z tkanki prążkowia szczura in vitro pod wpływem amfetaminy. Brain Res. 204, 361–372. doi: 10.1016/0006-8993(81)90595-3
Becker, JB (1999). Różnice płciowe w funkcji dopaminergicznej prążkowia i jądra półleżącego. Pharmacol. Biochem. Behav. 64, 803–812. doi: 10.1016/S0091-3057(99)00168-9
Berridge, KC, Robinson, TE (2016). Lubienie, pragnienie i teoria uzależnień uzależniających bodźców. Am. Psychol. 71, 670–679. doi: 10.1037/amp0000059
Berridge, KC, Venier, IL, Robinson, TE (1989). Analiza reaktywności smaku w afagii wywołanej 6-hydroksydopaminą: implikacje dla hipotez pobudzenia i anhedonii dotyczących funkcji dopaminy. Behav. Neurosci. 103, 36–45. doi: 10.1037/0735-7044.103.1.36
Broadbear, JH, Negus, SS, Butelman, ER, de Costa, BR, Woods, JH (1994). Zróżnicowane działanie ogólnoustrojowo podawanej norbinaltorfiminy (nor-BNI) na agonistów receptorów kappa-opioidowych w teście skręcania się u myszy. Psychopharmacology 115, 311–319. doi: 10.1007/BF02245071
Brown, RW, Perna, MK, Noel, DM, Whittemore, JD, Lehmann, J., Smith, ML (2011). Uczulenie lokomotoryczne na amfetaminę i warunkowa preferencja miejsca u dorastających samców i samic szczurów leczonych noworodkowo chinpirolem. Behav. Pharmacol. 22, 374–378. doi: 10.1097/FBP.0b013e328348737b
Bruchas, MR, Chavkin, C. (2010). Kaskady kinaz i sygnalizacja kierowana przez ligand w receptorze opioidowym kappa. Psychopharmacol. (Berl) 210, 137–147. doi: 10.1007/s00213-010-1806-y
Callaghan, CK, Rouine, J., O'Mara, SM (2018). Potencjalna rola receptorów opioidowych w motywacji i ciężkim zaburzeniu depresyjnym. Prog. Brain Res. 239, 89–119. doi: 10.1016/bs.pbr.2018.07.009
Carr, DB, Sesack, SR (2000). Neurony zawierające GABA w brzusznym obszarze nakrywki szczura projektują do kory przedczołowej. Synapse 38 (2), 114–123. doi: 10.1002/1098-2396(200011)38:2<114::AID-SYN2>3.0.CO;2-R
Casanova, JP, Velis, GP, Fuentealba, JA (2013). Uczulenie lokomotoryczne amfetaminą wiąże się ze zwiększonym uwalnianiem dopaminy stymulowanym wysokim stężeniem potasu w przyśrodkowej korze przedczołowej szczura. Behav. Brain Res. 237, 313–317. doi: 10.1016/j.bbr.2012.09.052
Chartoff, EH, Mavrikaki, M. (2015). Różnice płciowe w funkcjonowaniu receptora opioidowego kappa i ich potencjalny wpływ na uzależnienie. Front. Neurosci. 9, 466. doi: 10.3389/fnins.2015.00466
Chartoff, EH, Ebner, SR, Sparrow, A., Potter, D., Baker, PM, Ragozzino, ME i in. (2016). Względny czas między aktywacją receptora opioidowego kappa a kokainą determinuje wpływ na nagrodę i uwalnianie dopaminy. Neuropsychopharmacology 41, 989–1002. doi: 10.1038/npp.2015.226
Chavkin, C., Koob, GF (2016). Dynorfina, dysforia i uzależnienie: stres związany z uzależnieniem. Neuropsychopharmacology 41, 373–374. doi: 10.1038/npp.2015.258
Chefer, VI, Czyzyk, T., Bolan, EA, Moron, J., Pintar, JE, Shippenberg, T. S. (2005). Endogenne układy receptorów opioidowych kappa regulują dynamikę dopaminy w obszarze mezoakumbalnym i podatność na kokainę. J. Neurosci. 25, 5029–5037. doi: 10.1523/JNEUROSCI.0854-05.2005
Chefer, VI, Zapata, A., Shippenberg, TS, Bungay, PM (2006). Ilościowa mikrodializa bez przepływu netto umożliwia wykrycie wzrostu i spadku wychwytu dopaminy w jądrze półleżącym myszy. J. Neurosci. Methods 155, 187–193. doi: 10.1016/j.jneumeth.2005.12.018
Cole, RL, Konradi, C., Douglass, J., Hyman, SE (1995). Adaptacja neuronalna do amfetaminy i dopaminy: molekularne mechanizmy regulacji genu prodynorfiny w prążkowiu szczura. Neuron 14, 813–823. doi: 10.1016/0896-6273(95)90225-2
Conway, SM, Puttick, D., Russell, S., Potter, D., Roitman, MF, Chartoff, E. H. (2019). Kobiety są mniej wrażliwe niż mężczyźni na hamujące motywację i dopaminę działanie aktywacji receptora opioidowego kappa. Neuropharmacology 146, 231–241. doi: 10.1016/j.neuropharm.2018.12.002
Cope, ZA, Huggins, KN, Sheppard, AB, Noel, DM, Roane, DS, Brown, RW (2010). Leczenie chinpirolem u noworodków nasila aktywację lokomotoryczną i uwalnianie dopaminy w jądrze półleżącym w odpowiedzi na leczenie amfetaminą w wieku dorosłym. Synapse 64, 289–300. doi: 10.1002/syn.20729
Cox, BM, Young, AB, See, RE, Reichel, CM (2013). Różnice płciowe w poszukiwaniu metamfetaminy u szczurów: wpływ oksytocyny. Psychoneuroendocrinology 38, 2343–2353. doi: 10.1016/j.psyneuen.2013.05.005
Culver, KE, Szechtman, H., Levant, B. (2008). Zmienione wiązanie receptora dopaminowego D2 u szczurów z behawioralną nadwrażliwością na chinpirol: wpływ wstępnego leczenia Ro 41-1049. Eur. J. Pharmacol. 592, 67–72. doi: 10.1016/j.ejphar.2008.06.101
Dalman, FC, O'Malley, KL (1999). Tolerancja i zależność od opioidów kappa w kulturach neuronów dopaminergicznych śródmózgowia. J. Neurosci. 19, 5750–5757. doi: 10.1523/JNEUROSCI.19-14-05750.1999
De Vries, TJ, Schoffelmeer, AN, Binnekade, R., Raasø, H., Vanderschuren, LJ (2002). Nawrót do zachowań związanych z poszukiwaniem kokainy i heroiny, pośredniczony przez receptory dopaminy D2, jest zależny od czasu i związany z uwrażliwieniem behawioralnym. Neuropsychopharmacology 26, 18–26. doi: 10.1016/S0893-133X(01)00293-7
Devine, DP, Leone, P., Pocock, D., Wise, RA (1993). Zróżnicowany udział receptorów opioidowych MU, delta i kappa brzusznej części nakrywki w modulacji podstawowego uwalniania dopaminy mezolimbicznej: badania mikrodializowe in vivo. J. Pharmacol. Exp. Ther. 266, 1236–1246.
Di Chiara, G., Imperato, A. (1988). Przeciwstawne działanie agonistów receptorów opioidowych mu i kappa na uwalnianie dopaminy w jądrze półleżącym i jądrze ogoniastym grzbietowym u swobodnie poruszających się szczurów. J. Pharmacol. Exp. Ther. 244, 1067–1080. doi: 10.1073/pnas.85.14.5274
Dvorkin, A., Perreault, ML, Szechtman, H. (2006). Rozwój i organizacja czasowa kompulsywnego sprawdzania wywołanego wielokrotnymi wstrzyknięciami agonisty dopaminy, chinpirolu, w zwierzęcym modelu zaburzenia obsesyjno-kompulsyjnego. Behav. Brain Res. 169, 303–311. doi: 10.1016/j.bbr.2006.01.024
Ebner, SR, Roitman, MF, Potter, DN, Rachlin, AB, Chartoff, EH (2010). Działanie depresyjne salwinoryny A, agonisty receptora opioidowego kappa, jest związane ze zmniejszonym fazowym uwalnianiem dopaminy w jądrze półleżącym. Psychopharmacol. (Berl) 210, 241–252. doi: 10.1007/s00213-010-1836-5
Edwards, NJ, Tejeda, HA, Pignatelli, M., Zhang, S., McDevitt, RA, Wu, J. i in. (2017). Specyficzność obwodów w architekturze hamującej VTA reguluje zachowania wywołane kokainą. Nat. Neurosci. 20 (3), 438–448. doi: 10.1038/nn.4482
Ehrich, JM, Phillips, PEM, Chavkin, C. (2014). Aktywacja receptora opioidowego kappa potencjalizuje indukowany kokainą wzrost uwalniania dopaminy wywołanej, rejestrowany in vivo w jądrze półleżącym myszy. Neuropsychopharmacology 39, 3036–3048. doi: 10.1038/npp.2014.157
Ehrich, JM, Messinger, DI, Knakal, CR, Kuhar, JR, Schattauer, SS, Bruchas, MR i wsp. (2015). Awersja wywołana receptorem opioidowym kappa wymaga aktywacji kinazy p38 MAPK w neuronach dopaminowych VTA. J. Neurosci. 35, 12917–12931. doi: 10.1523/JNEUROSCI.2444-15.2015
Eilam, D., Szechtman, H. (1989). Dwufazowy wpływ agonisty receptora D-2, chinpirolu, na lokomocję i ruchy. Eur. J. Pharmacol. 161, 151–157. doi: 10.1016/0014-2999(89)90837-6
Eilam, D., Szechtman, H. (2005). Zachowanie wywołane psychostymulantami jako zwierzęcy model zaburzenia obsesyjno-kompulsywnego: etologiczne podejście do formy rytuałów kompulsywnych. CNS Spectr. 10, 191–202. doi: 10.1017/S109285290001004X
Escobar, AP, Cornejo, FA, Andrés, ME, Fuentealba, JA (2012). Powtarzane leczenie agonistą receptora opioidowego kappa U69593 odwraca wzmożone uwalnianie dopaminy indukowane przez K+ w jądrze półleżącym, ale nie ekspresję uczulenia lokomotorycznego u szczurów uczulonych na amfetaminę. Neurochem. Int. 60 (4), 344–349. doi: 10.1016/j.neuint.2012.01.014
Escobar, AP, Cornejo, FA, Olivares-Costa, M., González, M., Fuentealba, JA, Gysling, K. i in. (2015). Zmniejszona neurotransmisja dopaminy i glutaminianu w jądrze półleżącym u szczurów uwrażliwionych na chinpirol wskazuje na hamującą funkcję autoreceptora D2. J. Neurochem. 134, 1081–1090. doi: 10.1111/jnc.13209
Escobar, AP, González, MP, Meza, RC, Noches, V., Henny, P., Gysling, K. i in. (2017). Mechanizmy wzmocnienia receptora opioidowego kappa w funkcji receptora dopaminowego D2 w uwrażliwieniu lokomotorycznym wywołanym chinpirolem u szczurów. Int. J. Neuropsychopharmacol. 20, 660–669. doi: 10.1093/ijnp/pyx042
Everitt, BJ, Robbins, TW (2005). Neuronalne systemy wzmacniania w uzależnieniu od narkotyków: od działań, przez nawyki, po kompulsję. Nat. Neurosci. 8, 1481–1489. doi: 10.1038/nn1579
Fattore, L., Melis, M. (2016). Różnice płciowe w zachowaniach impulsywnych i kompulsywnych: skupienie się na uzależnieniu od narkotyków. Addict. Biol. 21 (5), 1043–1051. doi: 10.1111/adb.12381
Ferrario, CR, Gorny, G., Crombag, HS, Li, Y., Kolb, B., Robinson, TE (2005). Plastyczność neuronalna i behawioralna związana z przejściem od kontrolowanego do intensywnego używania kokainy. Biol. Psy. 58 (9), 751–9.
Figee, M., Pattij, T., Willuhn, I., Luigjes, J., van den Brink, W., Goudriaan, A. i in. (2016). Kompulsywność w zaburzeniach obsesyjno-kompulsywnych i uzależnieniach. EUR. Neuropsychofarmakol. 26, 856–868. doi: 10.1016/j.euroneuro.2015.12.003
Ford, CP, Mark, GP, Williams, JT (2006). Właściwości i hamowanie opioidowe neuronów dopaminowych układu mezolimbicznego różnią się w zależności od lokalizacji docelowej. J. Neurosci. 26, 2788–2797. doi: 10.1523/JNEUROSCI.4331-05.2006
Ford, CP, Beckstead, MJ, Williams, JT (2007). Hamowanie prądów postsynaptycznych hamujących dopaminę przez opioidy kappa. J. Neurophysiol. 97, 883–891. doi: 10.1152/jn.00963.2006
Fuentealba, JA, Gysling, K., Magendzo, K., Andrés, ME (2006). Wielokrotne podawanie selektywnego agonisty receptora kappa-opioidowego U-69593 zwiększa pozakomórkowe poziomy stymulowanej dopaminy w jądrze półleżącym szczura. J. Neurosci. Res. 84, 450–459. doi: 10.1002/jnr.20890
Fuentealba, JA, Gysling, K., Andrés, ME (2007). Zwiększona odpowiedź lokomotoryczna na amfetaminę indukowana wielokrotnym podaniem selektywnego agonisty receptora opioidowego kappa U-69593. Synapse 61, 771–777. doi: 10.1002/syn.20424
Gehrke, BJ, Chefer, VI, Shippenberg, TS (2008). Wpływ ostrego i powtarzanego podawania salwinoryny A na funkcję dopaminy w prążkowiu grzbietowym szczura. Psychopharmacol. (Berl) 197, 509–517. doi: 10.1007/s00213-007-1067-6
Giuliano, C., Belin, D., Everitt, BJ (2019). Kompulsywne sączenie po alkoholu wynika z braku wyłączenia kontroli prążkowia grzbietowo-bocznego nad zachowaniem. J. Neurosci. 39 (9), 1744–1754. doi: 10.1523/JNEUROSCI.2615-18.2018
Goto, Y., Grace, AA (2008). Przetwarzanie informacji limbicznej i korowej w jądrze półleżącym. Trends Neurosci. 31, 552–558. doi: 10.1016/j.tins.2008.08.002
Grace, AA, Bunney, BS (1980). Neurony dopaminowe jądra czarnego: rejestracja wewnątrzkomórkowa i identyfikacja za pomocą wstrzyknięcia L-dopy i histofluorescencji. Science 210, s. 654–656. doi: 10.1126/science.7433992
Gray, AM, Rawls, SM, Shippenberg, TS, McGinty, JF (1999). Agonista receptora κ-opioidowego, U-69593, zmniejsza ostre zachowania wywołane amfetaminą oraz zależne od wapnia poziomy dopaminy i glutaminianu w prążkowiu brzusznym. J. Neurochem. 73, 1066–1074. doi: 10.1046/j.1471-4159.1999.0731066.x
Graziane, NM, Polter, AM, Briand, LA, Pierce, RC, Kauer, JA (2013). Receptory opioidowe kappa regulują stresogenne poszukiwanie kokainy i plastyczność synaptyczną. Neuron 77, 942–954. doi: 10.1016/j.neuron.2012.12.034
Heidbreder, CA, Shippenberg, TS (1994). U-69593 zapobiega uczuleniu na kokainę poprzez normalizację dopaminy w jądrze półleżącym. Neuroreport 5, 1797–1800. doi: 10.1097/00001756-199409080-00028
Hernandez-Avila, CA 1., Rounsaville, BJ, Kranzler, HR (2004). Kobiety uzależnione od opioidów, marihuany i alkoholu wykazują szybszy postęp w leczeniu uzależnień. Drug Alcohol Depend. 74 (3), 265–272. doi: 10.1016/j.drugalcdep.2004.02.001
Hoffman, AF, Spivak, CE, Lupica, CR (2016). Zwiększone uwalnianie dopaminy przez inhibitory transportu dopaminy opisane za pomocą modelu ograniczonej dyfuzji i woltamperometrii cyklicznej z szybkim skanowaniem. ACS Chem. Neurosci. 7, 700–709. doi: 10.1021/acschemneuro.5b00277
Holden, C. (2001). Uzależnienia „behawioralne”: czy istnieją? Science 294, 980–982. doi: 10.1126/science.294.5544.980
Imperato, A., Di Chiara, G. (1988). Wpływ miejscowo stosowanych agonistów i antagonistów receptorów D-1 i D-2 badanych w dializie mózgu. Eur. J. Pharmacol. 156, 385–393. doi: 10.1016/0014-2999(88)90284-1
Jackson, KJ, McLaughlin, JP, Carroll, FI, Damaj, MI (2013). Wpływ antagonisty receptora opioidowego kappa, norbinaltorfiminy, na stres i wywołane lekami przywrócenie preferencji miejsca u myszy uwarunkowanej nikotyną. Psychopharmacol. (Berl) 226, 763–768. doi: 10.1007/s00213-012-2716-y
Kivell, B., Uzelac, Z., Sundaramurthy, S., Rajamanickam, J., Ewald, A., Chefer, V. i in. (2014). Salwinoryna A reguluje funkcję transportera dopaminy poprzez receptor opioidowy kappa i mechanizm zależny od ERK1/2. Neuropharmacology 86, 228–240. doi: 10.1016/j.neuropharm.2014.07.016
Koeltzow, TE, Austin, JD, Vezina, P. (2003). Uczulenie behawioralne na chinpirol nie jest związane ze zwiększonym przepełnieniem jądra półleżącego dopaminą. Neuropharmacology 44, 102–110. doi: 10.1016/S0028-3908(02)00328-3
Koob, GF, Volkow, ND (2016). Neurobiologia uzależnienia: analiza neuroobwodów. Lancet Psychiatry 3, 760–773. doi: 10.1016/S2215-0366(16)00104-8
Koob, GF (2013). Uzależnienie to zaburzenie z deficytem nagrody i nadmiarem stresu. Front. Psychiatry 4, 72. doi: 10.3389/fpsyt.2013.00072
Labad, J. 1., Menchon, JM, Alonso, P., Segalas, C., Jimenez, S., Jaurrieta, N. i in. (2008). Różnice płci w wymiarach objawów obsesyjno-kompulsywnych. Depresja lęku. 25 (10), 832–838. doi: 10.1002/da.20332
Maisonneuve, IM, Archer, S., Glick, SD (1994). U50,488, agonista receptora opioidowego kappa, osłabia indukowany kokainą wzrost pozakomórkowej dopaminy w jądrze półleżącym szczurów. Neurosci. Lett. 181, 57–60. doi: 10.1016/0304-3940(94)90559-2
Mansour, A., Fox, CA, Akil, H., Watson, SJ (1995). Ekspresja mRNA receptora opioidowego w ośrodkowym układzie nerwowym szczura: implikacje anatomiczne i funkcjonalne. Trends Neurosci. 18 (1), 22–29. doi: 10.1016/0166-2236(95)93946-U
Mansour, A., Burke, S., Pavlic, RJ, Akil, H., Watson, SJ (1996). Immunohistochemiczna lokalizacja sklonowanego receptora kappa 1 w ośrodkowym układzie nerwowym i przysadce mózgowej szczura. Neuroscience 71, 671–690. doi: 10.1016/0306-4522(95)00464-5
Margolis, EB, Karkhanis, AN (2019). Udział komórek i obwodów dopaminergicznych w awersji mediowanej receptorem opioidowym kappa. Neurochem. Int. 129, 104504. doi: 10.1016/j.neuint.2019.104504
Margolis, EB, Hjelmstad, GO, Bonci, A., Fields, HL (2003). Agoniści receptora kappa-opioidowego bezpośrednio hamują neurony dopaminergiczne śródmózgowia. J. Neurosci. 23, 9981–9986. doi: 10.1523/JNEUROSCI.23-31-09981.2003
Margolis, EB, Hjelmstad, GO, Bonci, A., Fields, HL (2005). Zarówno agonisty receptorów opioidowych Kappa, jak i Mu hamują wpływ glutaminergiczny na neurony brzusznego pola nakrywki. J. Neurophysiol. 93, 3086–3093. doi: 10.1152/jn.00855.2004
Margolis, EB, Lock, H., Chefer, VI, Shippenberg, TS, Hjelmstad, GO, Fields, HL (2006). Opioidy kappa selektywnie kontrolują neurony dopaminergiczne rzutujące do kory przedczołowej. Proc. Natl. Acad. Sci. USA 103, 2938–2942. doi: 10.1073/pnas.0511159103
Margolis, EB, Mitchell, JM, Ishikawa, J., Hjelmstad, GO, Fields, HL (2008). Neurony dopaminowe śródmózgowia: cel projekcji determinuje czas trwania potencjału czynnościowego i hamowanie receptora dopaminowego D(2). J. Neurosci. 28, 8908–8913. doi: 10.1523/JNEUROSCI.1526-08.2008
Mathews, IZ, McCormick, CM (2007). Samice i samce szczurów w późnej adolescencji różnią się od osobników dorosłych pod względem aktywności lokomotorycznej wywołanej amfetaminą, ale nie pod względem warunkowej preferencji miejsca dla amfetaminy. Behav. Pharmacol. 18, 641–650. doi: 10.1097/FBP.0b013e3282effbf5
Mathis, MA 1., Pd, A., Funaro, G., RC, T., Moraes, I., AR, T. i in. (2011). Różnice płciowe w zaburzeniach obsesyjno-kompulsyjnych: przegląd literatury. Braz. J. Psychiatry 33 (4), 390–399. doi: 10.1590/S1516-44462011000400014
McLaughlin, JP, Marton-Popovici, M., Chavkin, C. (2003). Antagonizm receptora opioidowego kappa i zaburzenie genu prodynorfiny blokują reakcje behawioralne wywołane stresem. J. Neurosci. 23 (13), 5674–5683. doi: 10.1523/JNEUROSCI.23-13-05674.2003
McLaughlin, JP, Land, BB, Li, S., Pintar, JE, Chavkin, C. (2006a). Wcześniejsza aktywacja receptorów opioidowych kappa przez U50,488 naśladuje powtarzany wymuszony stres pływania, potencjalizując warunkowanie preferencji miejsca kokainy. Neuropsychopharmacology 31, 787–794. doi: 10.1038/sj.npp.1300860
McLaughlin, JP, Li, S., Valdez, J., Chavkin, TA, Chavkin, C. (2006b). Reakcje behawioralne wywołane stresem porażki społecznej są pośredniczone przez endogenny układ opioidowy kappa. Neuropsychopharmacology 31 (6), 1241–1248. doi: 10.1038/sj.npp.1300872
Milesi-Hallé, A., McMillan, DE, Laurenzana, EM, Byrnes-Blake, KA, Owens, SM (2007). Różnice płciowe w reakcji behawioralnej wywołanej (+)-amfetaminą i (+)-metamfetaminą u samców i samic szczurów rasy Sprague-Dawley. Pharmacol. Biochem. Behav. 86, 140–149. doi: 10.1016/j.pbb.2006.12.018
Negus, SS, Mello, NK, Portoghese, PS, Lin, CE (1997). Wpływ opioidów kappa na samopodawanie kokainy przez makaki rezus. J. Pharmacol. Exp. Ther. 282, 44–55.
Nestler, EJ (2001). Molekularne podstawy długotrwałej plastyczności leżącej u podstaw uzależnienia. Nat. Rev. Neurosci. 2, 119–128. doi: 10.1038/35053570
Perreault, ML, Graham, D., Bisnaire, L., Simms, J., Hayton, S., Szechtman, H. (2006). Agonista opioidów kappa U69593 potencjalizuje uwrażliwienie lokomotoryczne na agonistę D2/D3, chinpirol: mechanizmy pre- i postsynaptyczne. Neuropsychopharmacology 31, 1967–1981. doi: 10.1038/sj.npp.1300938
Perreault, ML, Seeman, P., Szechtman, H. (2007). Stymulacja receptora opioidowego kappa przyspiesza patogenezę kompulsywnego sprawdzania w modelu uwrażliwienia na chinpirol w zaburzeniach obsesyjno-kompulsyjnych (OCD). Behav. Neurosci. 121, 976–991. doi: 10.1037/0735-7044.121.5.976
Pierce, RC, Kalivas, PW (1997). Model obwodowy ekspresji behawioralnej sensytyzacji na psychostymulanty o działaniu amfetaminopodobnym. Brain Res. Brain Res. Rev. 25, 192–216. doi: 10.1016/S0165-0173(97)00021-0
Polter, AM, Bishop, RA, Briand, LA, Graziane, NM, Pierce, RC, Kauer, JA (2014). Blokada receptorów opioidowych kappa po stresie zapobiega długotrwałemu potencjałowaniu synaps hamujących i nawrotowi uzależnienia od kokainy. Biol. Psychiatry 76, 785–793. doi: 10.1016/j.biopsych.2014.04.019
Puig-Ramos, A., Santiago, GS, Segarra, AC (2008). U-69593, agonista receptora opioidowego kappa, zmniejsza uczulenie behawioralne wywołane kokainą u samic szczurów. Behav. Neurosci. 122, 151–160. doi: 10.1037/0735-7044.122.1.151
Robbins, TW, Gillan, CM, Smith, DG, de Wit, S., Ersche, KD (2012). Neuropoznawcze endofenotypy impulsywności i kompulsywności: w kierunku psychiatrii wymiarowej. Trends Cognit. Sci. 16, s. 81–91. doi: 10.1016/j.tics.2011.11.009
Roberts, DCS, Bennett, SAL, Vickers, GJ (1989). Cykl rujowy wpływa na samopodawanie kokainy w schemacie progresywnym u szczurów. Psychopharmacol. (Berl) 98, 408–411. doi: 10.1007/BF00451696
Robinson, TE, Berridge, KC (1993). Neuronalne podłoże głodu narkotykowego: teoria uzależnień oparta na bodźcach i uwrażliwieniu. Brain Res. Brain Res. Rev. 18, 247–291. doi: 10.1016/0165-0173(93)90013-P
Robinson, TE, Berridge, KC (2001). Uwrażliwienie na bodźce i uzależnienie. Uzależnienie 96, 103–114. doi: 10.1046/j.1360-0443.2001.9611038.x
Rose, JH, Karkhanis, AN, Steiniger-Brach, B., Jones, SR (2016). Wyraźny wpływ nalmefenu na szybkość wychwytu dopaminy i aktywność receptora opioidowego kappa w jądrze półleżącym po przewlekłej, okresowej ekspozycji na etanol. Int. J. Mol. Sci. 17, 1216. doi: 10.3390/ijms17081216
Schlosburg, JE, Whitfield, TW, Jr., Park, PE, Crawford, EF, George, O., Vendruscolo, LF i in. (2013). Długotrwały antagonizm receptorów opioidowych κ zapobiega eskalacji i zwiększonej motywacji do zażywania heroiny. J. Neurosci. 33 (49), 19384–19392. doi: 10.1523/JNEUROSCI.1979-13.2013
Sesack, SR, Pickel, VM (1992). Podwójna ultrastrukturalna lokalizacja immunoreaktywności enkefaliny i hydroksylazy tyrozynowej w brzusznym obszarze nakrywki szczura: liczne substraty interakcji opioidów z dopaminą. J. Neurosci. 12, 1335–a1350. doi: 10.1523/JNEUROSCI.12-04-01335.1992
Sesack, SR, Aoki, C., Pickel, VM (1994). Ultrastrukturalna lokalizacja immunoreaktywności podobnej do receptora D2 w neuronach dopaminowych śródmózgowia i ich celach prążkowia. J. Neurosci. 14, 88–106. doi: 10.1523/JNEUROSCI.14-01-00088.1994
Sesia, T., Bizup, B., Grace, AA (2013). Ocena zwierzęcych modeli zaburzeń obsesyjno-kompulsyjnych: korelacja z fazową aktywnością neuronów dopaminowych. Int. J. Neuropsychopharmacol. 16, 1295–1307. doi: 10.1017/S146114571200154X
Shippenberg, TS, Zapata, A., Chefer, VI (2007). Dynorfina i patofizjologia uzależnienia od narkotyków. Pharmacol. Ther. 116, 306–321. doi: 10.1016/j.pharmthera.2007.06.011
Smith, JA, Loughlin, SE, Leslie, FM (1992). Hamowanie kappa-opioidowe uwalniania [3H]dopaminy z hodowli rozdzielonych komórek brzusznego śródmózgowia szczura. Mol. Pharmacol. 42.
Smith, JW, Fetsko, LA, Xu, R., Wang, Y. (2002). Myszy z wyłączonym receptorem dopaminy D2L wykazują deficyty w zakresie pozytywnych i negatywnych właściwości wzmacniających morfiny oraz w uczeniu się unikania. Neuroscience 113 (4), 755–765. doi: 10.1016/S0306-4522(02)00257-9
Smith, JS, Schindler, AG, Martinelli, E., Gustin, RM, Bruchas, MR, Chavkin, C. (2012). Aktywacja układu receptorów dynorfinowych/κ-opioidowych w ciele migdałowatym wywołana stresem potencjalizuje preferencję miejsca uwarunkowaną nikotyną. J. Neurosci. 32, 1488–1495. doi: 10.1523/JNEUROSCI.2980-11.2012
Spanagel, R., Herz, A., Shippenberg, TS (1992). Przeciwstawne, tonicznie aktywne endogenne układy opioidowe modulują szlak dopaminergiczny układu mezolimbicznego. Proc. Natl. Acad. Sci. 89, 2046–2050. doi: 10.1073/pnas.89.6.2046
Speciale, SG, Manaye, KF, Sadeq, M., German, DC (1993). Receptory opioidowe w dopaminergicznych obszarach śródmózgowia szczura. II. Autoradiografia receptorów kappa i delta. J. Neural Transm. Gen. Sect. 91, 53–66. doi: 10.1007/BF01244918
Sperling, RE, Gomes, SM, Sypek, EI, Carey, AN, McLaughlin, JP (2010). Endogenna mediacja kappa-opioidów w stresogennym potencjalizowaniu preferencji miejsca i samopodawania etanolu. Psychopharmacol. (Berl) 210 (2), 199–209. doi: 10.1007/s00213-010-1844-5
Steketee, JD, Kalivas, PW (2011). Chęć sięgnięcia po narkotyki: uwrażliwienie behawioralne i nawrót do zachowań związanych z poszukiwaniem narkotyków, red. Sibley DR. Pharmacol. Rev. 63, 348–365. doi: 10.1124/pr.109.001933
Stuchlik, A., Radostová, D., Hatalova, H., Vales, K., Nekovarova, T., Koprivova, J. i in. (2016). Ważność szczurzego modelu OCD uczulonego na chinpirol: łączenie dowodów z badań na zwierzętach i klinicznych. Przód. Zachowaj się. Neurologia. 10, 209. doi: 10.3389/fnbeh.2016.00209
Sun, T., Song, Z., Tian, Y., Tian, W., Zhu, C., Ji, G. i in. (2019). Sygnały z jądra migdałowatego boczno-podstawnego do środkowej kory przedczołowej kontrolują zachowania sprawdzające, podobne do zaburzeń obsesyjno-kompulsywnych. Proc. Natl. Acad. Sci. USA 116, 3799–3804. doi: 10.1073/pnas.1814292116
Svingos, AL, Chavkin, C., Colago, EEO, Pickel, VM (2001). Główna współekspresja receptorów opioidowych α-β i transportera dopaminy w profilach aksonów jądra półleżącego. Synapse 42, 185–192. doi: 10.1002/syn.10005
Szechtman, H., Talangbayan, H., Eilam, D. (1993). Środowiskowe i behawioralne składniki sensytyzacji indukowanej agonistą dopaminy – chinpirolem. Behav. Pharmacol. 4, 405–410. doi: 10.1097/00008877-199308000-00014
Szechtman, H., Talangbayan, H., Canaran, G., Dai, H., Eilam, D. (1994). Dynamika uwrażliwienia behawioralnego indukowanego przez agonistę dopaminy – chinpirol – i proponowany mechanizm centralnej kontroli energii. Psychopharmacol. (Berl) 115, 95–104. doi: 10.1007/BF02244757
Szechtman, H., Sulis, W., Eilam, D. (1998). Kwinpirol wywołuje kompulsywne sprawdzanie u szczurów: potencjalny model zwierzęcy zaburzenia obsesyjno-kompulsywnego (OCD). Behav. Neurosci. 112, 1475–1485. doi: 10.1037/0735-7044.112.6.1475
Szechtman, H., Culver, K., Eilam, D. (1999). Rola układów dopaminowych w zaburzeniu obsesyjno-kompulsyjnym (OCD): implikacje z nowego modelu zwierzęcego wywołanego psychostymulantem. Pol. J. Pharmacol. 51, 55–61.
Szechtman, H., Eckert, MJ, Tse, WS, Boersma, JT, Bonura, C a, JZ, M. i in. (2001). Kompulsywne sprawdzanie u szczurów uczulonych na chinpirol jako zwierzęcy model zaburzenia obsesyjno-kompulsyjnego (OCD): forma i kontrola. BMC Neurosci. 2, 4. doi: 10.1186/1471-2202-2-4
Szechtman, H., Ahmari, SE, Beninger, RJ, Eilam, D., Harvey, BH, Edemann-Callesen, H. i in. (2017). Zaburzenie obsesyjno-kompulsyjne: wnioski z badań na modelach zwierzęcych. Neurosci. Biobehav. Rev. 76, 254–279. doi: 10.1016/j.neubiorev.2016.04.019
Tejeda, HA, Bonci, A. (2019). Kontrola dynamiki dopaminy przez receptor dynorfinowy/kappa-opioidowy: Implikacje dla negatywnych stanów afektywnych i zaburzeń psychicznych. Brain Res. 1713, 91–101. doi: 10.1016/j.brainres.2018.09.023
Tejeda, HA, Wu, J., Kornspun, AR, Pignatelli, M., Kashtelyan, V., Krashes, M. J. i in. (2017). Modulacja równowagi pobudzenia i hamowania przez receptor opioidowy kappa-specyficzny dla szlaków i komórek różnicowo bramkuje aktywność neuronów d1 i d2 półleżących. Neuron 93 (1), 147–163. doi: 10.1016/j.neuron.2016.12.005
Thompson, AC, Zapata, A., Justice, JB, Vaughan, RA, Sharpe, LG, Shippenberg, TS (2000). Aktywacja receptora opioidowego kappa modyfikuje wychwyt dopaminy w jądrze półleżącym i przeciwdziała działaniu kokainy. J. Neurosci. 20, 9333–9340. doi: 10.1523/JNEUROSCI.20-24-09333.2000
Thompson, D., Martini, L., Whistler, JL (2010). Zmieniony stosunek receptorów dopaminowych D1 i D2 w prążkowiu myszy jest związany z behawioralną wrażliwością na kokainę. PloS One 5, e11038. doi: 10.1371/journal.pone.0011038
Usiello, A., Baik, J.-H., Rougé-Pont, F., Picetti, R., Dierich, A., LeMeur, M. i in. (2000). Odmienne funkcje dwóch izoform receptorów dopaminy D2. Nature 408, 199–203. doi: 10.1038/35041572
Van Bockstaele, EJ, Pickel, VM (1995). Neurony zawierające GABA w brzusznym obszarze nakrywki projektują do jądra półleżącego w mózgu szczura. Brain Res. 682 (1-2), 215–221. doi: 10.1016/0006-8993(95)00334-M
Van't Veer, A., Bechtholt, AJ, Onvani, S., Potter, D., Wang, Y., Liu-Chen, LY i in. (2013). Ablacja receptorów opioidowych kappa z neuronów dopaminowych mózgu ma działanie przeciwlękowe i nasila plastyczność indukowaną kokainą. Neuropsychopharmacology 38 (8), 1585–1597. doi: 10.1038/npp.2013.58
Vanderschuren, LJ, Kalivas, PW (2000). Zmiany w przekazie dopaminergicznym i glutaminergicznym w indukcji i ekspresji sensytyzacji behawioralnej: krytyczny przegląd badań przedklinicznych. Psychopharmacol. (Berl) 151 (2-3), 99–120. doi: 10.1007/s002130000493
Volkow, ND, Wise, RA, Baler, R. (2017). Układ motywacyjny dopaminy: implikacje dla uzależnienia od narkotyków i żywności. Nat. Rev. Neurosci. 18, 741–752. doi: 10.1038/nrn.2017.130
Walker, QD, Rooney, MB, Wightman, RM, Kuhn, CM (2000). Uwalnianie i wychwyt dopaminy są większe w prążkowiu samic szczurów niż samców, co zmierzono szybką woltamperometrią cykliczną. Neuroscience 95, 1061–1070. doi: 10.1016/S0306-4522(99)00500-X
Wee, S., Koob, GF (2010). Rola układu opioidowego dynorfina-κ w działaniu wzmacniającym substancji psychoaktywnych. Psychopharmacol. (Berl) 210, 121–135. doi: 10.1007/s00213-010-1825-8
Wee, S., Orio, L., Ghirmai, S., Cashman, JR, Koob, GF (2009). Hamowanie receptorów opioidowych kappa osłabiło zwiększone spożycie kokainy u szczurów z przedłużonym dostępem do kokainy. Psychopharmacol. (Berl) 205, 565–575. doi: 10.1007/s00213-009-1563-y
Whitfield, TW, Jr., Schlosburg, JE, Wee, S., Gould, A., George, O., Grant, Y. i in. (2015). Receptory opioidowe κ w powłoce jądra półleżącego pośredniczą w nasileniu spożycia metamfetaminy. J. Neurosci. 35 (10), 4296–4305. doi: 10.1523/JNEUROSCI.1978-13.2015
Williams, MT, Mugno, B., Franklin, M., Faber, S. (2013). Wymiary objawów w zaburzeniu obsesyjno-kompulsyjnym: fenomenologia i wyniki leczenia z wykorzystaniem ekspozycji i prewencji rytualnej. Psychopathology 46, s. 365–376. doi: 10.1159/000348582
Wilson, CJ, Young, SJ, Groves, PM (1977). Właściwości statystyczne ciągów impulsów neuronalnych w istocie czarnej: typy komórek i ich interakcje. Brain Res. 136, 243–260. doi: 10.1016/0006-8993(77)90801-0
Wise, RA (2009). Rola dopaminy nigrostriatalnej – nie tylko mezokortykolimbicznej – w nagradzaniu i uzależnieniu. Trends Neurosci. 32, 517–524. doi: 10.1016/j.tins.2009.06.004
Xiao, L., Becker, JB (1994). Ilościowa mikrodializa oznaczająca pozakomórkowe stężenie dopaminy w prążkowiu u samców i samic szczurów: wpływ cyklu rujowego i gonadektomii. Neurosci. Lett. 180, 155–158. doi: 10.1016/0304-3940(94)90510-X
Yager, LM, Garcia, AF, Wunsch, AM, Ferguson, SM (2015). Tajemnice prążkowia: rola w uzależnieniu od narkotyków. Neuroscience 301, 529–541. doi: 10.1016/j.neuroscience.2015.06.033
Słowa kluczowe: receptor opioidowy kappa, dopamina, kompulsywność, amfetamina, chinpirol, uczulenie ruchowe
Cytowanie: Escobar AdP, Casanova JP, Andrés ME i Fuentealba JA (2020) Przesłuch między układami opioidowymi kappa i dopaminowymi w zachowaniach kompulsywnych. Front. Pharmacol. 11:57. doi: 10.3389/fphar.2020.00057
Otrzymano: 16 października 2019 r .; Przyjęte: 22 stycznia 2020 r .;
Opublikowane: 18 February 2020.
Edytowany przez:
Gonzalo E. Yevenes , Uniwersytet Concepcion, Chile
Zrecenzowany przez:
Luisa Gerardo Aguayo, Uniwersytet Poczęcia, Chile
Hugo Tejedy, National Institute on Drug Abuse (NIDA), Stany Zjednoczone
Cecylia Skorza, Instituto de Investigaciones Biológicas Clemente Estable (IIBCE), Urugwaj
Prawa autorskie © 2020 Escobar, Casanova, Andrés i Fuentealba. Niniejszy artykuł jest dostępny w otwartym dostępie i rozpowszechniany na warunkach licencji Creative Commons Attribution (CC BY) . Wykorzystanie, dystrybucja lub reprodukcja na innych forach jest dozwolona pod warunkiem wskazania autorów i właścicieli praw autorskich oraz podania źródła oryginalnej publikacji w tym czasopiśmie, zgodnie z przyjętą praktyką akademicką. Wykorzystanie, dystrybucja lub reprodukcja niezgodne z niniejszymi warunkami są niedozwolone.
*Korespondencja: José Antonio Fuentealba, [e-mail chroniony]
† ORCID: José Antonio Fuentealba, orcid.org/0000-0003-0775-0675