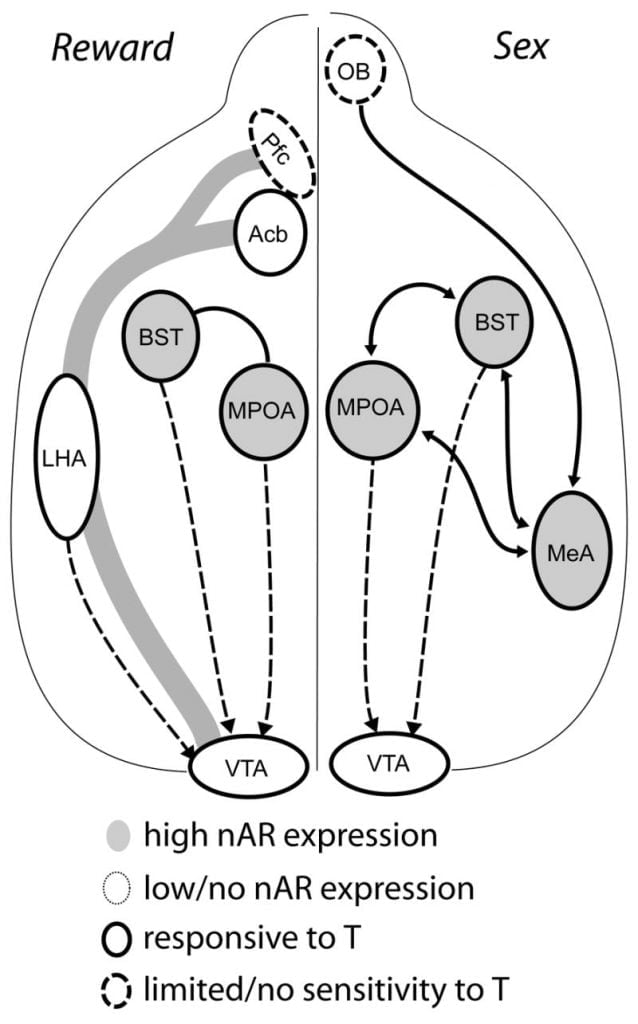
UWAGI: Doskonały przegląd prawie wszystkich istotnych badań dotyczących receptorów androgenowych, dopaminy i funkcji seksualnych. Fantastyczne rysowanie wzajemnych relacji między podwzgórzem a nagrodą.
Horm Behav. 2008 maj; 53 (5) : 647–658.
Opublikowano w Internecie 13 lutego 2008 r. doi: 10.1016/j.yhbeh.2008.01.010
Abstrakcja
Dorastanie wiąże się ze wzrostem zachowań poszukujących przyjemności, które z kolei są kształtowane przez dojrzewanie płciowe osi podwzgórze-przysadka-gonad. W zwierzęcych modelach naturalnie nagradzających zachowań, takich jak seks, androgeny jąder przyczyniają się do rozwoju i ekspresji zachowania u mężczyzn. Aby wywołać dojrzewanie behawioralne, mózg ulega znacznej przebudowie w okresie dojrzewania, a wiele zmian jest również wrażliwych na androgeny, przypuszczalnie działające poprzez receptory androgenowe (AR). Biorąc pod uwagę delikatną interakcję hormonów gonadalnych i rozwoju mózgu, nie jest niespodzianką, że zaburzenia poziomu hormonów w tym wrażliwym okresie znacząco zmieniają zachowania nastolatków i dorosłych. U samców chomików ekspozycja na testosteron w okresie dojrzewania jest wymagana do normalnego wyrażania dorosłych zachowań seksualnych. Samce pozbawione androgenów w okresie dojrzewania wykazują utrzymujące się niedobory w kryciu. I odwrotnie, same androgeny nie są wystarczające do wywołania krycia u samców przed okresem dojrzewania, nawet jeśli AR mózgu są obecne przed okresem dojrzewania. W tym kontekście szeroko rozpowszechnione stosowanie steroidów anaboliczno-androgennych (AAS) w okresie dojrzewania jest istotnym problemem. Nadużywanie AAS może zmienić zarówno czas, jak i poziom androgenów u nastolatków. U chomików ekspozycja młodzieży na AAS zwiększa agresję i powoduje trwałe zmiany w układach neuroprzekaźników. Ponadto AAS same się wzmacniają, czego dowodem jest samodzielne podawanie testosteronu i innych AAS. Jednak ostatnie dowody sugerują, że wzmacniające działanie androgenów może nie wymagać klasycznego AR. Dlatego też, dla lepszego zrozumienia nadużywania AAS, konieczne jest dalsze badanie interakcji między androgenami a zachowaniami nagradzającymi w mózgu nastolatka.
Przegląd
Okres dojrzewania otwiera mózg zarówno na przyjemność, jak i ryzyko. U nastolatków często przybiera to formę eksperymentowania z narkotykami i seksem. W Stanach Zjednoczonych mediana wieku pierwszego stosunku płciowego u mężczyzn wynosi 16.4 lat, a 65% odbyło stosunek do 12. klasy ( Kaiser Family Foundation, 2005 ). Podobnie, populacja ta ma najwyższy wskaźnik używania nielegalnych narkotyków w Stanach Zjednoczonych. Według Narodowego Badania Używania Narkotyków i Zdrowia z 2004 r., 38% mężczyzn w wieku 18–25 lat zażyło nielegalne narkotyki w ciągu ostatniego roku ( SAMHSA/OAS, 2005 ). Ponadto 31% nastoletnich chłopców zażyło narkotyki lub alkohol podczas swojego ostatniego zbliżenia seksualnego ( Kaiser Family Foundation, 2005 ). Ponadto okres dojrzewania jest kluczowym czasem w etiologii niektórych psychopatologii, takich jak depresja, lęk, zaburzenia odżywiania i zaburzenia zachowania. Zakładamy, że wydzielanie hormonów gonadowych w okresie dojrzewania, aktywacja przez nie receptorów steroidowych w mózgu oraz interakcja między hormonami a doświadczeniami w rozwoju mózgu nastolatków przyczyniają się do zmian w zachowaniu obserwowanych w okresie dojrzewania.
Naszym celem jest dokonanie przeglądu dowodów na to, że androgeny gonadalne pośredniczą w dojrzewaniu młodzieży i osiągnięciach motywowanych zachowań u dorosłych, jak również w nagradzających właściwościach tych zachowań. Prezentujemy również dowody, że sam testosteron jest satysfakcjonujący, co prawdopodobnie przyczynia się do dojrzałych zmian zachowań motywowanych w okresie dojrzewania, kiedy poziom testosteronu wzrasta. W niniejszym artykule skupiono się na naszych badaniach obwodów nerwowych leżących u podstaw męskich zachowań seksualnych, zwłaszcza w chomiku syryjskim, ze szczególnym uwzględnieniem interakcji między testosteronem i dopaminą (DA). Proponujemy, aby androgeny płciowe miały zarówno przejściowy, jak i długoterminowy wpływ na obwody nagrody i zmotywowane zachowania. Dalej stawiamy hipotezę, że suplementacja egzogennymi androgenami w postaci steroidów anaboliczno-androgennych (AAS) zwiększa normalne wpływy dojrzewania androgenów, wpływając negatywnie na rozwój mózgu i zachowania nastolatków.
Dojrzewanie jako wrażliwy okres rozwoju mózgu
Ostatecznie mózg jest zarówno wyzwalaczem, jak i celem działania androgenów w okresie dojrzewania. U młodych chłopców (<12 lat) i młodych chomików (<28 dni) krążące androgeny i gonadotropiny są na poziomie podstawowym. Ponieważ wydzielanie hormonu luteinizującego z przedniego płata przysadki wzrasta w odpowiedzi na hormon uwalniający gonadotropiny w podwzgórzu, stężenie krążącego testosteronu znacznie wzrasta. Dzieje się tak u chłopców w stadium II / III Tannera (14 lat) i chomików w wieku 28 dni. Zanim chłopcy osiągną IV / V stadium Tannera (ok. 16 lat) lub gdy chomiki są w wieku 50–60 dni, poziom endogennego testosteronu jest w zakresie dorosłego mężczyzny. Wydzielanie hormonów w okresie dojrzewania przypada na okres dojrzewania, który u ludzi przypada od około 12 do 20 lat. Hormony dojrzewania oddziałują nie tylko na tkanki obwodowe, powodując pojawienie się drugorzędowych cech płciowych, które są jawnymi oznakami dojrzewania, ale działają również centralnie, wpływając zarówno na przebudowę mózgu nastolatka, jak i na dojrzewanie behawioralne. Co więcej, fizjologiczne i neurologiczne zmiany wywołane przez hormony dojrzewania prowadzą do znaczących zmian w doświadczeniach jednostki, które same w sobie mogą głęboko zmienić przebieg rozwoju mózgu. Zatem wzrost w okresie dojrzewania płciowych hormonów steroidowych, napędzany dojrzewaniem w czasie rozwojowej osi neuroendokrynnej rozrodczej, z kolei kształtuje rozwój behawioralny nastolatków poprzez bezpośredni i pośredni wpływ na układ nerwowy.
Ludzki okres dojrzewania jest obecnie uznawany za główny i dynamiczny okres rozwoju neuronów, podczas którego układy behawioralne są przebudowywane i udoskonalane. Chociaż mózg 5-letniego dziecka jest już 90% jego dorosłego rozmiaru (Dekaban, 1978), znaczna przebudowa jest jeszcze przed nami. Koncepcja ta została zapoczątkowana przez badania zarówno na ludziach, jak i zwierzętach, dokumentujące, że wiele podstawowych procesów rozwojowych zachodzących podczas rozwoju mózgu okołoporodowego jest podsumowywane w okresie dojrzewania. Procesy te obejmują neurogenezę (Eckenhoff i Rakic, 1988; On i Crews, 2007; Pinos, Collado, Rodriguez-Zafra, Rodriguez, Segovia i Guillamon, 2001; Rankin, Partlow, McCurdy, Giles i Fisher, 2003), Zaprogramowana śmierć komórki (Nunez, Lauschke i Juraska, 2001; Nunez, Sodhi i Juraska, 2002), opracowywanie i przycinanie arborizacji i synaps dendrytycznych (Andersen, Rutstein, Benzo, Hostetter i Teicher, 1997; Huttenlocher i Dabholkar, 1997; Lenroot i Giedd, 2006; Sowell, Thompson, Leonard, Welcome, Kan i Toga, 2004), mielinizacja (Benes, Turtle, Khan i Farol, 1994; Paus, Collins, Evans, Leonard, Pike i Zijdenbos, 2001; Sowell, Thompson, Tessner i Toga, 2001) i zróżnicowanie seksualne (Chung, De Vries i Swaab, 2002; Davis, Shryne i Gorski, 1996; Nunez i in., 2001). Tak więc trajektoria rozwojowa mózgu postnatalnego nie jest liniowa, ale charakteryzuje się gwałtownymi zmianami nastolatków i obejmuje zarówno wydarzenia progresywne, jak i regresywne. Jak wie każdy biolog rozwojowy, okresy szybkich zmian rozwojowych sygnalizują zwiększoną wrażliwość i podatność zarówno na zmianę zależną od doświadczenia, jak i na negatywne konsekwencje zaburzeń i zniewag, i nie ma powodu, by sądzić, że rozwój ludzkiego mózgu u nastolatków jest wyjątkiem (Andersen, 2003; Włócznia, 2000). Przewiduje się, że perturbacje w okresie dojrzewania hormonalnego dojrzewania na mózg nastolatka będą miały długotrwałe konsekwencje dla zachowania dorosłych.
Androgeny i obwody nerwowe dla zachowań motywowanych
Ponieważ dojrzewanie jest przejściową i dynamiczną fazą rozwoju, trudno byłoby ocenić mózg i zachowanie nastolatków w izolacji. Zamiast tego, aby docenić wyjątkowy charakter okresu dojrzewania, pomocne jest skontrastowanie go z mózgiem i zachowaniem dojrzałych dorosłych. Tak więc, skupiając się na tym artykule na męskim zachowaniu seksualnym i nagrodzie, ważne jest, aby wprowadzić obwody nerwowe do kopulacji i motywacji seksualnej u dorosłych mężczyzn, w tym rolę hormonów steroidowych gonad w aktywacji behawioralnej i dystrybucji receptorów dla androgenów (AR) i estrogeny (ER).
AR są obecne w grupach komórkowych, które tworzą obwody neuronalne pośredniczące w nagradzających zachowaniach społecznych, takich jak seks. Ponadto, mózgowe AR są wyrażane przed okresem dojrzewania u chomików i są regulowane przez androgeny zarówno u młodych, jak i dorosłych samców ( Kashon, Hayes, Shek i Sisk, 1995 ; Meek, Romeo, Novak i Sisk, 1997 ). W mózgu gryzoni istnieje znaczne nakładanie się w rozmieszczeniu AR i ER ( Wood i Newman, 1995 ) oraz aromatazy ( Celotti, Negri-Cesi i Poletti, 1997 ), w tym obu form α i β receptora estrogenowego ( Shughrue, Lane i Merchenthaler, 1997 ). Po związaniu z ligandem, „klasyczne” AR i ER działają jako czynniki transkrypcyjne, indukując transkrypcję i syntezę nowych białek. Nic dziwnego, że te efekty następują po stosunkowo powolnym przebiegu czasowym, z opóźnionym początkiem działania. Stymulacja zachowań seksualnych samców chomika sterydami ( Noble i Alsum, 1975 ) jest zgodna z działaniami poprzez klasyczne działania genomiczne. Na przykład, 2 tygodnie ekspozycji na sterydy są wymagane do przywrócenia krycia u długotrwale kastrowanych osobników. Nowsze badania na szczurach wykazały również szybkie efekty komórkowe androgenów w obszarach mózgu, które posiadają niewiele klasycznych receptorów ( Mermelstein, Becker i Surmeier, 1996 ). Uważa się, że te działania steroidów są pośredniczone przez receptory niegenomowe. Podczas gdy dystrybucja klasycznych AR i ER w mózgu chomika jest stosunkowo ograniczona ( Wood i Swann, 1999 ), potencjalne cele mózgowe dla niegenomowego działania androgenów są znacznie szersze.
Medialny obszar przedwzrokowy (MPOA) odgrywa kluczową rolę w kopulacji u samców od złotych rybek do ludzi (omówiono w Hull, Wood i McKenna, 2006 ). Co więcej, MPOA chomika transdukuje hormony steroidowe gonadowe poprzez obfite AR i ER, a implanty testosteronu w MPOA są wystarczające, aby przywrócić aktywność seksualną u długoterminowych kastrowanych osobników ( Wood i Swann, 1999 ). U samców szczurów steroidy gonadowe działają w MPOA, regulując podstawowe uwalnianie DA ( Putnam, Sato i Hull, 2003 ) i stymulując gody ( Hull, Du, Lorrain i Matuszewich, 1995 ). Początkowo występuje niewielki wzrost DA, gdy samica jest prezentowana za ekranem. Podczas kopulacji, DA MPOA wzrasta dalej (+50% wartości bazowej), a ten efekt wymaga androgenów ( Hull i in., 1995 ; Putnam i in., 2003 ). Nic dziwnego, że u wykastrowanych samców, które nie kopulują, DA MPOA nie wzrasta ( Hull i in., 1995 ). Trudno jest zinterpretować ten wynik, ponieważ brak uwalniania DA jest utrudniony przez brak aktywności seksualnej. Jednakże uwalnianie DA w MPOA koreluje z utratą kopulacji u kastratów krótkoterminowych ( Hull i in., 1995 ) oraz z przywróceniem aktywności seksualnej wywołanym testosteronem u kastratów długoterminowych ( Du, Lorrain i Hull, 1998 ; Putnam, Du, Sato i Hull, 2001 ).
W obrębie MPOA gryzoni, androgenne i estrogenne metabolity testosteronu odgrywają określone role w regulacji łączenia się w pary ( Putnam i in., 2003 ; Putnam, Sato, Riolo i Hull, 2005 ). Opóźnienie w zainicjowaniu kopulacji (wzlot lub intromit) jest jedną z miar motywacji seksualnej. Opóźnienie w aktywności seksualnej jest wrażliwe na estrogeny, poprzez utrzymanie syntazy tlenku azotu MPOA, która z kolei utrzymuje podstawowe poziomy DA. Kastraci leczeni estrogenem wykazują wysokie podstawowe poziomy DA, które silnie korelują ze zdolnością do zainicjowania kopulacji. Jednak nie wykazują wzrostu uwalniania DA wywołanego przez samice i kopulację, co silnie koreluje z wydajnością seksualną. W konsekwencji ich wydajność seksualna jest poniżej poziomów nienaruszonych. Z drugiej strony, kastraci leczeni wyłącznie niearomatyzowalnymi androgenami nie wykazują podwyższonych podstawowych poziomów DA i nie inicjują kopulacji. Zatem do prawidłowej sprawności seksualnej niezbędne są zarówno estrogeny, jak i androgeny. Sprawność seksualna jest zazwyczaj wyrażana jako miary częstotliwości zbliżeń, intromisji i ejakulacji. Dopiero po zastąpieniu estrogenów i androgenów, kastrowani mężczyźni wykazują podwyższony poziom DA (i krótsze okresy latencji) oraz wzrost poziomu DA wywołany przez samice i kopulację (i zwiększoną częstotliwość). W ten sposób estrogeny w MPOA przyczyniają się do motywacji seksualnej, a zarówno estrogeny, jak i androgeny do sprawności seksualnej.
Chociaż testosteron jest niezbędny do uwalniania DA MPOA podczas zachowań kopulacyjnych samców i do samego kopulacji, ani testosteron ani kopulacja same w sobie nie mogą wywołać DA w MPOA. Zamiast tego, wskazówki chemosensoryczne od samic tego samego gatunku są również wymagane do uwalniania DA w MPOA. U gryzoni bodźce chemosensoryczne są podstawową modalnością sensoryczną inicjującą zachowania seksualne samców ( Ryc. 1 ). Wskazówki chemosensoryczne są przekazywane z cebulek węchowych do MPOA poprzez jądro ciała migdałowatego środkowego i jądro łożyska prążka końcowego, struktury z dużą ilością AR i ER ( Wood i Swann, 1999 ). Aby określić rolę wskazówek chemosensorycznych w DA indukowanej przez kopulację, zmierzyliśmy DA MPOA podczas kopulacji u samców chomików z nienaruszoną gonadą po jednostronnej olfaktorektomii (UBx, Triemstra, Nagatani i Wood, 2005 ). Chociaż obustronne usunięcie cebulek węchowych eliminuje aktywność seksualną i uwalnianie DA MPOA, jednostronna bulbektomia nie zakłóca kopulacji. W tym badaniu, kopulacja indukowała uwalnianie DA MPOA, gdy mierzono ją przeciwstronnie do uszkodzonej cebulki węchowej, ale nie w półkuli ipsilateralnej ( Ryc. 2 ). Podobne wyniki zaobserwowano u samców szczurów z uszkodzeniami ciała migdałowatego przyśrodkowego ( Dominguez, Riolo, Xu i Hull, 2001 ). W powiązanym badaniu, chemiczna stymulacja ciała migdałowatego przyśrodkowego u szczurów indukowała uwalnianie DA MPOA równoważne temu podczas kopulacji ( Dominguez i Hull, 2001 ). Łącznie, dane te sugerują, że testosteron tworzy permisywne środowisko, które pozwala zewnętrznym bodźcom sensorycznym dotrzeć do MPOA i wywołać uwalnianie DA podczas kopulacji.

Rys. 2
Ostatecznie zachowania seksualne i inne naturalne nagrody aktywują neuronalne ścieżki nagrody. Mezokortykolimbiczny obwód DA składa się z brzusznego obszaru nakrywki (VTA), jądra półleżącego (Acb) i kory przedczołowej (Pfc). Ciała komórek dopaminowych znajdujące się w VTA projektują rostralnie do Acb i Pfc ( Koob i Nestler, 1997 ). U szczurów DA jest uwalniana do Acb podczas seksu ( Pfaus, Damsma, Nomikos, Wenkstern, Blaha, Phillips i Fibiger, 1990 ). Wiele narkotyków działa również w mezokortykolimbicznym układzie DA, zwiększając uwalnianie DA (amfetaminy) lub hamując wychwyt zwrotny DA (kokaina, Di Chiara i Imperato, 1988 ), wzmacniając w ten sposób ich właściwości uzależniające. W ten sposób testosteron ma potencjał wpływania na uwalnianie DA w Acb zarówno poprzez wzmocnienie zachowań seksualnych, jak i poprzez swoje działanie jako narkotyk (patrz poniżej).
Aktualne dowody sugerują, że układ DA mezokortykolimbiczny dojrzewa w okresie dojrzewania. Gęstość włókien DA Acb dramatycznie wzrasta w okresie dojrzewania u gerbili, co sugeruje, że znaczące dojrzewanie projekcji dopaminergicznych VTA do Acb następuje w okresie dojrzewania ( Lesting, Neddens i Teuchert-Noodt, 2005 ). Ponadto, dopaminergiczne wejście do komórek GABA (kwas γ-aminomasłowy)-ergicznych w przyśrodkowej korze przedczołowej szczura jest wzbogacane i modulowane przez układy serotoninergiczne w okresie dojrzewania ( Benes, Taylor i Cunningham, 2000 ), a manipulacja androgenami u dorosłych szczurów prowadzi do zmian w gęstości aksonów dopaminergicznych w korze przedczołowej ( Kritzer, 2003 ). Pfc, Acb i VTA mają niewiele AR lub ER, chociaż ERβ jest obecny w VTA ( Shughrue i in., 1997 ). Dlatego wydaje się prawdopodobne, że androgeny wpływają na mezokortykolimbiczny układ DA poprzez wrażliwe na androgeny włókna aferentne lub poprzez ERβ w VTA, jak w podwzgórzu (Handa i in., to wydanie). Nasze dane pokazują, że komórki wrażliwe na androgeny u samców chomików projektują do VTA ze struktur związanych z zachowaniami wrażliwymi na steroidy. Na przykład zarówno MPOA, jak i jądro łożyska prążka końcowego (BST) zawierają dużą liczbę komórek AR-dodatnich projektujących do VTA ( Sato i Wood, 2006 ). Brzuszna gałka blada, główny cel eferentny Acb ( Zahm i Heimer, 1990 ), również zawiera wiele komórek AR-dodatnich projektujących do VTA. Projekcje te dają androgenom możliwość modyfikacji aktywności układu DA mezokortykolimbicznego.
Organizacja zachowań zależnych od steroidów w okresie dojrzewania
Tradycyjny pogląd na temat działania hormonów na zachowania nastolatków opiera się na efektach aktywizujących hormonów steroidowych, które odnoszą się do zdolności steroidów do ułatwiania zachowań w określonych kontekstach społecznych poprzez działanie na komórki docelowe w obwodach nerwowych leżących u podstaw zachowania. Efekty aktywizujące są przejściowe w tym sensie, że pojawiają się i znikają wraz z obecnością lub brakiem hormonów i są zazwyczaj związane z ekspresją zachowań dorosłych. Natomiast efekty organizacyjne odnoszą się do zdolności steroidów do kształtowania struktury układu nerwowego w trakcie rozwoju. Organizacja strukturalna jest trwała, utrzymuje się po okresie ekspozycji na hormony i determinuje reakcje neuronalne i behawioralne na steroidy w wieku dorosłym. Nasza wiedza na temat związku rozwojowego między organizacyjnymi a aktywizującymi efektami hormonów steroidowych ewoluowała w ciągu ostatnich 50 lat. Phoenix i współpracownicy jako pierwsi zaproponowali, że reakcje behawioralne (aktywacyjne) na hormony steroidowe u dorosłych są programowane (organizowane) przez hormony steroidowe w okresie maksymalnej wrażliwości rozwoju okołoporodowego ( Phoenix, Goy, Gerall i Young, 1959 ). Później Scott i współpracownicy położyli teoretyczne podwaliny pod istnienie wielu okresów wrażliwych na postępującą organizację układu nerwowego i zauważyli, że okresy wrażliwe najprawdopodobniej występują w okresach szybkich zmian rozwojowych (1974). Następnie Arnold i Breedlove wskazali, że zależna od steroidów organizacja mózgu może występować poza okresami wrażliwymi rozwoju ( Arnold i Breedlove, 1985 ). W ciągu ostatnich 15 lat badania wykorzystujące różnorodne modele zwierzęce i systemy behawioralne jasno pokazują, że mózg nastolatka jest wrażliwy na zarówno aktywacyjne, jak i organizacyjne efekty steroidów gonadowych (przegląd w Sisk i Zehr, 2005 ). I tak jak inne okresy szybkich zmian rozwojowych, okres dojrzewania stanowi określone okno możliwości dla zależnego od steroidów przebudowy mózgu.
Nasze badania z wykorzystaniem chomika jako modelu zwierzęcego dostarczają dowodów na to, że zachowania społeczne samców są modyfikowane przez sterydy w okresie dojrzewania ( Schulz, Menard, Smith, Albers i Sisk, 2006 ; Schulz i Sisk, 2006 ). Przed okresem dojrzewania leczenie testosteronem nie może aktywować zachowań seksualnych u chomików, co sugeruje, że procesy dojrzewania, które czynią obwody neuronalne podatnymi na aktywację lub organizację przez hormony steroidowe, jeszcze nie zaszły ( Meek i in., 1997 ; Romeo, Richardson i Sisk, 2002a ). Z drugiej strony, podczas gdy jawna ekspresja męskich zachowań reprodukcyjnych w wieku dorosłym nie wymaga bezwzględnie obecności sterydów gonadowych w okresie dojrzewania, maksymalna ekspresja zachowań już tak. Porównując męskie zachowania reprodukcyjne u samców kastrowanych przed okresem dojrzewania (NoT@P) lub po okresie dojrzewania (T@P), a następnie leczonych testosteronem w wieku dorosłym, kastraci przed okresem dojrzewania NoT@P mają co najmniej 50% deficyt w zachowaniach męskich w porównaniu z samcami kastrowanymi po okresie dojrzewania ( Rys. 3 , Schulz, Richardson, Zehr, Osetek, Menard i Sisk, 2004 ). Ponadto deficyty w zachowaniach reprodukcyjnych są długotrwałe i nie można ich przezwyciężyć ani poprzez długotrwałe leczenie testosteronem, ani poprzez doświadczenia seksualne w wieku dorosłym ( Schulz i in., 2004 ). Podobnie, po leczeniu estrogenem i progesteronem, samce NoT@P wykazują krótsze latencje lordozy i dłuższy czas trwania lordozy niż samce kastrowane w wieku dorosłym ( Schulz i in., 2004 ), co sugeruje, że kastraci przed okresem dojrzewania są mniej defeminizowani niż samce narażone na testosteron w okresie dojrzewania.

Rys. 3
Być może samce NoT@P cierpią na zmniejszoną motywację seksualną. Jednym ze sposobów odpowiedzi na to pytanie jest porównanie okresów latencji do angażowania się zarówno w badanie odbytu i narządów płciowych (AGI), jak i w krycie u samców poddanych gonadektomii przed (NoT@P) i po okresie dojrzewania (T@P). Jeśli motywacja seksualna jest zależna od ekspozycji na hormony gonadowe w okresie dojrzewania, moglibyśmy przewidywać dłuższe okresy latencji do angażowania się w zachowania seksualne u samców NoT@P. Rzeczywiście, przy powtarzającej się ekspozycji na samice w rui, samcom NoT@P zajmuje więcej czasu rozpoczęcie AGI i krycia w porównaniu z samcami T@P ( ryc. 4 ). Tak więc, oprócz organizowania aspektów sprawności seksualnej, wydaje się, że hormony dojrzewania organizują również nagradzające aspekty zachowań seksualnych. Na poparcie tej hipotezy, centralne podanie agonisty receptora DA, apomorfiny, w wieku dorosłym, przywraca zachowania samców NoT@P do poziomu typowego dla osobników dorosłych, co sugeruje, że testosteron w okresie dojrzewania prawidłowo organizuje dopaminergiczne obwody neuronalne (Salas-Ramirez, Montalto i Sisk, 2006). Niemniej jednak, pozostaje wiele interesujących pytań. Czy samce NoT@P, stosujące barpress, rozwiną preferencje co do miejsca krycia? Przyszłe badania będą koncentrować się na roli hormonów dojrzewania płciowego w organizacji motywacji seksualnej i sprawności seksualnej.

Rys. 4
Czasy latencji i trwania badania anogenitalnego (AGI) u samców chomików poddanych gonadektomii przed okresem dojrzewania (NoT@P) lub po okresie dojrzewania (T@P). Wszystkie samce były poddawane testosteronowi w wieku dorosłym, 7 tygodni po gonadektomii i tydzień przed pierwszym testem behawioralnym. A. Samce T@P wykazywały podobne czasy latencji AGI w trzech testach z samicą w rui, podczas gdy samce NoT@P wydłużyły czasy latencji AGI w trzecim teście z samicą w rui. B. Samce T@P skracały czasy latencji krycia w trzech testach behawioralnych z samicą w rui, podczas gdy samce noT@P nie wykazywały zmian w czasie latencji krycia w trzech testach behawioralnych. Dane te sugerują, że hormony gonadowe okresu dojrzewania mają trwały, wspomagający wpływ na motywację dorosłych samców do angażowania się w zachowania seksualne z samicą. (Niepublikowane dane dotyczące zwierząt w Schulz, KM, Richardson, HN, Zehr, JL, Osetek, AJ, Menard, TA i Sisk, CL, 2004 ).
Prepubertalne reakcje behawioralne na steroidy
Jedną z nieustających zagadek rozwoju behawioralnego w okresie dojrzewania jest to, dlaczego aktywacja zachowań rozrodczych w odpowiedzi na ekspozycję na sterydy jest osłabiona u samców chomików w okresie przedpokwitaniowym. Skoro niski poziom androgenów przed okresem dojrzewania ogranicza ekspresję męskich zachowań seksualnych u samców w okresie przedpokwitaniowym, to suplementacja endogennych androgenów u samców w okresie przedpokwitaniowym powinna sprzyjać kopulacji. Okazuje się, że nie jest to prawdą ( Meek i in., 1997 ; Romeo, Cook-Wiens, Richardson i Sisk, 2001 ; Romeo, Wagner, Jansen, Diedrich i Sisk, 2002b ), pomimo faktu, że liczba i rozmieszczenie AR i ER w całym cyklu godowym są podobne u leczonych hormonami kastratów przedpokwitaniowych i dorosłych ( Meek i in., 1997 ; Romeo, Diedrich i Sisk, 1999 ; Romeo i in., 2002a ). Dlatego wydaje się, że androgeny i AR są konieczne, ale niewystarczające do ekspresji męskich zachowań seksualnych.
Wysiłki mające na celu identyfikację czynników ograniczających aktywność seksualną przed okresem dojrzewania były dotychczas niejednoznaczne. Reakcje fos na sygnały chemosensoryczne pochodzące od samic w rui są podobne u chomików przedpokwitaniowych i dorosłych ( Romeo, Parfitt, Richardson i Sisk, 1998 ). Dane te dowodzą, że mechanizmy transdukcji sensorycznej dojrzewają przed okresem dojrzewania. Zatem młode samce są w stanie wykrywać sygnały chemosensoryczne pochodzące od samic; różnią się one od osobników dorosłych sposobem reagowania na te sygnały. Jednym z potencjalnych wyjaśnień jest to, że samce przedpokwitaniowe nie są zmotywowane do podejmowania zachowań seksualnych. Odkryliśmy, że samce chomików w okresie przedpokwitaniowym nie wykazują zwiększonych reakcji dopaminergicznych w MPOA w odpowiedzi na feromony żeńskie, podczas gdy dorosłe samce, które nie były wcześniej seksualne, wykazują silne reakcje dopaminergiczne MPOA na te same bodźce ( Ryc. 5 , Schulz, Richardson, Romeo, Morris, Lookingland i Sisk, 2003 ). Podobnie, samce w okresie przedpokwitaniowym nie wykazują typowego dla dorosłych wzrostu krążącego testosteronu po ekspozycji na feromony żeńskie ( Parfitt, Thompson, Richardson, Romeo i Sisk, 1999 ). Zatem feromony żeńskie wydają się być bezwarunkowym bodźcem dla odpowiedzi neurochemicznych i neuroendokrynnych u dorosłych, ale nie u samców w okresie przedpokwitaniowym, co sugeruje, że wyrazistość tych społecznie istotnych bodźców sensorycznych zmienia się w trakcie rozwoju dojrzewania, prawdopodobnie w związku z nabywaniem właściwości nagradzających i motywacji seksualnej. Ponadto, chociaż testosteron ułatwia AGI u samic u samców przed okresem dojrzewania, efekt ten zależy od tego, czy samiec miał wcześniej kontakt z samicą w rui. Być może zaskakujące jest to, że leczenie testosteronem skraca okres latencji i wydłuża czas trwania AGI tylko u samców przed okresem dojrzewania, którzy nie byli wcześniej seksualnie naiwni ( Ryc. 6 ). Co więcej, samce przed okresem dojrzewania, które miały już jedno doświadczenie z samicą, wykazują znacznie dłuższe okresy latencji AGI i krótsze czasy trwania AGI niż samce wchodzące w interakcje z samicami receptywnymi po raz pierwszy ( Ryc. 6 ). Dane te sugerują, że interakcje z samicą w rui mają charakter awersyjny, a nie nagradzający przed okresem dojrzewania, eliminując w ten sposób wszelkie ułatwiające efekty testosteronu na AGI podczas kolejnych interakcji z samicą. Interesujące byłoby ustalenie, czy negatywne konsekwencje behawioralne wczesnego kontaktu z samicą w rui utrzymują się w okresie dojrzewania i dorosłości, zwłaszcza że wielokrotny kontakt z samicami w rui w okresie dojrzewania zazwyczaj ułatwia ekspresję zachowań reprodukcyjnych samców ( Molenda-Figueira, Salas-Ramirez, Schulz, Zehr, Montalto i Sisk, 2007 ).

Rys. 5
Reakcje dopaminergiczne środkowego obszaru przedwzrokowego (MPOA) u mężczyzn w okresie przedpokwitaniowym i dorosłych na feromony żeńskie zawarte w wydzielinie pochwowej. Dorośli mężczyźni wykazują wzrost aktywności dopaminergicznej MPOA pod wpływem żeńskiej wydzieliny pochwowej, podczas gdy u mężczyzn w okresie przedpokwitaniowym nie obserwuje się zwiększonej reakcji dopaminergicznej MPOA na feromony żeńskie. (Przedruk z: Schulz, KM, Richardson, HN, Romeo, RD, Morris, JA, Lookingland, KJ i Sisk, CL, 2003 ).

Chociaż leczenie androgenami w okresie przedpokwitaniowym nie może wywołać kopulacji, ostatnie badania naszego laboratorium sugerują, że układ nerwowy chomika jest wrażliwy na organizujące działanie testosteronu na zachowania reprodukcyjne przed okresem dojrzewania ( Schulz, Zehr, Salas-Ramirez i Sisk, 2007 ). Kastracja plus 19 dni ekspozycji na testosteron przed lub w trakcie okresu dojrzewania, ale nie po nim, ułatwiły zachowania krycia, gdy testosteron został zastąpiony w wieku dorosłym. Samce narażone na testosteron w okresie przedpokwitaniowym wykazywały również więcej intromisji w wieku dorosłym niż samce narażone na testosteron w trakcie lub po okresie dojrzewania ( Schulz i in., 2007 ). Dane te sugerują, że zdolność testosteronu do organizowania behawioralnych obwodów neuronalnych maleje z wiekiem i że okres dojrzewania oznacza koniec przedłużonego postnatalnego okresu wrażliwości na ekspozycję na testosteron.
Androgeny farmakologiczne
Powyższe dane sugerują, że endogenne sterydy gonadalne wzmacniają motywowane zachowania w okresie dojrzewania. Co się stanie, jeśli ktoś sam sobie poda androgeny w stężeniach do 100x przekraczających normalne stężenia fizjologiczne? To jest problem nadużywania sterydów anaboliczno-androgennych (SAA) (omówiono w Brower, 2002 ; Clark i Henderson, 2003 ). Krótka dygresja jest tutaj odpowiednia: wszystkie SAA są pochodnymi testosteronu, wszystkie SAA mają szkielet węglowy z 4 połączonymi pierścieniami, większość ma 19 atomów węgla. SAA są stosowane głównie ze względu na ich działanie anaboliczne (budujące mięśnie). Jednak, jak sama nazwa wskazuje, SAA mają również właściwości androgenne. Testosteron jest logicznym wyborem w badaniach na zwierzętach w celu zbadania podstawowych mechanizmów nagrody androgenowej. Pozostaje popularnym wyborem również dla użytkowników ludzkich, najczęściej w postaci długo działających estrów testosteronu, takich jak propionian testosteronu. W 2006 roku testosteron był najczęściej wykrywaną zakazaną substancją w testach moczu w laboratoriach akredytowanych przez WADA ( WADA, 2006 ). Testosteron stanowił największą frakcję (34%) pozytywnych wyników testów moczu na obecność SAA podczas Igrzysk Olimpijskich w Sydney w 2000 roku ( Van Eenoo i Delbeke, 2003 ). Podobnie w testach moczu użytkowników SAA, 41% dało wynik pozytywny na obecność testosteronu ( Brower, Catlin, Blow, Eliopulos, Beresford, 1991 ). W dużych dawkach SAA powodują znaczące zmiany w zachowaniu. W szczególności, ze względu na ich bliski związek z testosteronem, stosowanie SAA w okresie dojrzewania wydaje się zaburzać normalne środowisko sterydowe rozwijającego się ludzkiego układu nerwowego nastolatka, w tym ilość, czas i rodzaj ekspozycji na sterydy.
Podobnie jak w przypadku innych nielegalnych narkotyków, nadużywanie SAA przez ludzi jest problemem okresu dojrzewania. Według Narodowego Badania Gospodarstw Domowych dotyczącego Używania Narkotyków z 1994 r. ( SAMHSA/OAS, 1996 ), używanie sterydów osiąga szczyt w późnej adolescencji, w wieku 18 lat. Ponadto, w badaniu Monitoring the Future ( Johnston, O'Malley i Bachman, 2003 ), częstość używania sterydów w ciągu całego życia wśród uczniów ostatnich klas szkół średnich (2.7%) była porównywalna z częstością używania cracku (3.5%) lub heroiny (1.4%). Używanie sterydów jest również coraz powszechniejsze w młodszym wieku: 2.5% uczniów ósmej klasy (13–14 lat) używało sterydów, podobnie jak częstość używania cracku (2.5%) i heroiny (1.6%). Ta tendencja do stosowania SAA wśród nastolatków jest szczególnie niepokojąca w świetle obaw, 1) że nastolatkowie mogą być szczególnie podatni na nadużywanie SAA oraz 2) że narażenie nastolatków na działanie SAA w dawkach farmakologicznych może znacząco zmienić normalne dojrzewanie mózgu i zachowanie, powodując przesadne reakcje morfologiczne i behawioralne, zarówno w stadium ostrym, jak i przewlekłym.
Niewłaściwa agresja to reakcja behawioralna najczęściej związana z nadużywaniem AAS przez człowieka. W opublikowanych opisach przypadków stosowanie steroidów jest związane z kilkoma brutalnymi morderstwami (Conacher i Workman, 1989; Pope and Katz, 1990; Pope, Kouri, Powell, Campbell i Katz, 1996; Schulte, Hall i Boyer, 1993). W badaniach dotyczących obecnych użytkowników AAS podwyższona agresja i drażliwość były najczęstszymi behawioralnymi skutkami ubocznymi stosowania AAS (Bond, Choi i Pope, 1995; Galligani, Renck i Hansen, 1996; Midgley, Heather i Davies, 2001; Parrott, Choi i Davies, 1994; Perry, Kutscher, Lund, Yates, Holman i Demers, 2003). Jednakże, biorąc pod uwagę zakres ekspozycji na androgeny, różnorodność objawów psychiatrycznych i potencjał wcześniej istniejącej dysfunkcji psychiatrycznej, trudno jest określić dokładną rolę AAS w tych przypadkach agresji ludzkiej. Wyniki badań prospektywnych ochotników otrzymujących zastrzyki z AAS zostały zmieszane: Tricker i in. (1996) oraz O'Connor i in. (2004) nie odnotowano wzrostu zachowań wściekłych, podczas gdy w innych badaniach zaobserwowano zwiększoną agresję (Daly, Su, Schmidt, Pickar, Murphy i Rubinow, 2001; Hannan, Friedl, Zold, Kettler i Plymate, 1991; Kouri, Lukas, Pope i Oliva, 1995; Pope and Katz, 1994; Su, Pagliaro, Schmidt, Pickar, Wolkowitz i Rubinow, 1993). Niemniej jednak ważne jest, aby pamiętać, że dawki podawane ochotnikom są znacznie niższe niż dawki zalecane na stronach internetowych dotyczących budowy ciała, a czas trwania leczenia jest na ogół krótki. Tak więc, w sumie, wydaje się słuszne wnioskować, że AAS mogą potencjalnie wzmacniać zachowanie agonistyczne, przynajmniej u osób podatnych. Pope i in. (1994) stwierdzili, że AAS wywołuje objawy psychiczne u osób podatnych na zagrożenia.
Badania na zwierzętach dostarczyły również przekonujących dowodów na agresję wywołaną przez SAA. Dorastające samce chomików leczone przewlekle dużymi dawkami sterydów mają krótsze okresy latencji ataku i większą liczbę ataków i ugryzień w kierunku samca intruza w porównaniu z samcami nieleczonymi ( Harrison, Connor, Nowak, Nash i Melloni, 2000 ; Melloni, Connor, Hang, Harrison i Ferris, 1997 ). Podobnie, łagodna prowokacja (uszczypnięcie ogona) powoduje trwały wzrost agresji u dorastających samców szczurów, w tym agresję wobec samic ( Cunningham i McGinnis, 2006 ). Co jeszcze bardziej niepokojące, ekspozycja chomików na SAA w okresie dojrzewania powoduje długotrwały wzrost zachowań agonistycznych, który utrzymuje się po zaprzestaniu stosowania sterydów ( Grimes i Melloni, 2006 ). Tym zmianom behawioralnym towarzyszy trwała przebudowa obwodów neuronalnych w przednim podwzgórzu. W szczególności ekspozycja na SAA w okresie dojrzewania u chomików zwiększa poziom wazopresyny argininowej (AVP, Grimes i Melloni, 2006 ) oraz obniża poziom serotoniny i serotoninergicznych receptorów 5HT1A i 5HT1B ( Ricci, Rasakham, Grimes i Melloni, 2006 ). Nie powinno dziwić, że SAA zmieniają również poziom AR w mózgu. Przewlekła ekspozycja na testosteron lub nandrolon zwiększa poziom AR w jądrach komórkowych u samców szczurów ( Menard i Harlan, 1993 ; Wesson i McGinnis, 2006 ). Zatem istnieje potencjał, aby SAA wzmacniały zachowania zależne od androgenów zarówno poprzez suplementację endogennych androgenów, jak i poprzez zwiększanie reakcji androgenowej poprzez zwiększoną ekspresję AR.
W porównaniu z zachowaniami agonistycznymi, SAA wywierają mniej wyraźny wpływ na zachowania godowe u samców gryzoni, a reakcja zależy od zastosowanego sterydu (opisano w Clark i Henderson, 2003 ). U samców chomików przyjmujących testosteron w postaci roztworów doustnych, ejakulacje wzrastały zależnie od dawki (Wood, 2002). Jednak ani testosteron, ani nandrolon nie poprawiały kojarzenia się u dorastających samców szczurów. Stanozolol, stosunkowo słabszy SAA o minimalnej aktywności androgennej, faktycznie hamował zarówno kojarzenie, jak i agresję (Farrell i McGinnis, 2003), prawdopodobnie poprzez obniżenie poziomu endogennych androgenów.
Szczególnie ważne jest zauważenie, że chomiki w okresie dojrzewania i dorosłe mogą wykazywać różne reakcje behawioralne na ekspozycję na AAS. Podczas gdy AAS wyraźnie nasiliły zachowania agonistyczne u samców w okresie dojrzewania, to samo leczenie w wieku dorosłym spowodowało jedynie niewielki wzrost zachowań agresywnych i znaczące zmniejszenie zachowań seksualnych ( Salas-Ramirez, Montaldo i Sisk, 2008 ). Jest to zgodne z koncepcją okresu dojrzewania jako wrażliwego na działanie androgenów. Ponadto, tak jak dorosłe samce chomików nabywają tolerancję na egzogenny testosteron ( Peters i Wood, 2005 ), uważamy, że rozwijające się samce nabywają tolerancję na testosteron w miarę dojrzewania. Zatem skutki AAS zmieniają się w trakcie rozwoju młodzieńczego, a ekspozycja na AAS w okresie dojrzewania może powodować nadmierne wzorce zachowań agresywnych i seksualnych, które mogą utrzymywać się w wieku dorosłym.
Wzmacniające działanie androgenów
Zarówno krycie, jak i walka są nagradzające (przynajmniej jeśli wygrasz walkę). Samce szczurów będą wielokrotnie naciskać dźwignię, aby kopulować z samicą ( Everitt i Stacey, 1987 ). Podobnie samce myszy i samice chomików wytworzą warunkową preferencję miejsca (CPP) dla lokalizacji, w których wcześniej wygrały walki ( Martinez, Guillen-Salazar, Salvador i Simon, 1995 ; Meisel i Joppa, 1994 ). Jeśli AAS mogą wzmacniać nagradzające zachowania społeczne powyżej poziomów normalnie obserwowanych u samców z nienaruszonymi gonadami, logiczne jest oczekiwanie, że sam testosteron może być nagradzający. Zostało to przetestowane przy użyciu dwóch dobrze ugruntowanych modeli zwierzęcych nagrody i wzmocnienia: CPP i samopodawanie. Wyniki tych badań pokazują, że testosteron jest wzmacniający w kontekście eksperymentalnym, w którym efekty anaboliczne i wyniki sportowe nie mają znaczenia. W przypadku CPP substancja testowa jest wielokrotnie parowana z unikalnym środowiskiem (na przykład konkretną komorą w aparacie testowym). Gdy zwierzę skojarzy wzmacniającą substancję testową z tym środowiskiem, będzie go poszukiwać nawet w przypadku braku nagrody. Pierwsze doniesienia o nagrodzie androgenowej u zwierząt laboratoryjnych wykorzystywały systemowe zastrzyki testosteronu w celu wywołania CPP u samców myszy ( Arnedo, Salvador, Martinez-Sanchis i Gonzalez-Bono, 2000 ; Arnedo, Salvador, Martinez-Sanchis i Pellicer, 2002 ) i szczurów ( Alexander, Packard i Hines, 1994 ; de Beun, Jansen, Slangen i Van de Poll, 1992 ). Następnie w naszym laboratorium wykorzystano samopodawanie testosteronu w celu zademonstrowania wzmocnienia androgenowego ( Johnson i Wood, 2001 ). Stwierdziliśmy, że samce chomików będą dobrowolnie spożywać doustne roztwory testosteronu, stosując zarówno testy wyboru dwóch butelek, jak i picie wywołane jedzeniem. W późniejszych badaniach zademonstrowaliśmy dożylne samopodawanie u samców szczurów i chomików ( Wood, Johnson, Chu, Schad i Self, 2004 ). Podanie dożylne eliminuje potencjalne zakłócające wpływy smaku lub wypełnienia jelit na wchłanianie androgenów.
W kontekście nadużywania SAA, ważne jest rozróżnienie ośrodkowego i obwodowego działania androgenów. Ponieważ testosteron ma szeroko rozprzestrzenione działanie w całym organizmie, można argumentować, że nagroda i wzmocnienie za pomocą ogólnoustrojowych iniekcji testosteronu są wtórne w stosunku do ogólnoustrojowych działań anabolicznych i androgennych testosteronu. Innymi słowy, być może testosteron zmniejsza zmęczenie mięśni i poprawia funkcjonowanie stawów, tak że zwierzęta po prostu czują się lepiej. Rzeczywiście, to wyjaśnienie zostało wykorzystane w literaturze klinicznej (choć bez dowodów eksperymentalnych) do argumentowania przeciwko potencjalnemu uzależnieniu od SAA ( DiPasquale, 1998 ). Jednakże Packard i wsp. ( Packard, Cornell i Alexander, 1997 ) wykazali, że iniekcje testosteronu bezpośrednio do mózgu szczura mogą wywołać CPP. Podobnie, nasze laboratorium wykazało samopodawanie testosteronu do komór mózgowych (ICV) u samców chomików ( Wood i wsp., 2004 ). Domózgowe CPP i samopodawanie testosteronu do komór mózgowych przemawiają za centralnymi celami pośredniczącymi we wzmocnieniu androgenów.
Warto zauważyć, że wzmocnienie testosteronem niekoniecznie podąża za tymi samymi mechanizmami, które wcześniej ustalono dla wpływu sterydów na zachowania seksualne. Jak omówiono wcześniej, MPOA jest kluczowym miejscem organizacji zachowań seksualnych u samców gryzoni ( Hull, Meisel i Sachs, 2002 ). U chomików MPOA ma liczne receptory steroidowe, a implanty testosteronu w MPOA przywracają aktywność seksualną u długoterminowych kastratów ( Wood i Swann, 1999 ). Przebieg czasowy tych efektów sterydowych jest powolny: zachowanie montażowe utrzymuje się przez tygodnie po orchidektomii, a dłuższa ekspozycja na sterydy jest konieczna do przywrócenia krycia u długoterminowych kastratów ( Noble i Alsum, 1975 ). Jednak wstrzyknięcia testosteronu do MPOA u samców szczurów nie wywołują CPP ( King, Packard i Alexander, 1999 ). Sugeruje to, że inne obszary mózgu są ważne dla wzmocnienia androgenami.
Natomiast samce szczurów utworzą CPP na wstrzyknięcia testosteronu w Acb ( Packard i in., 1997 ). Podobnie jak w przypadku innych narkotyków, DA prawdopodobnie jest kluczowym neuroprzekaźnikiem dla wzmocnienia testosteronem: CPP indukowane przez ogólnoustrojowe wstrzyknięcia testosteronu jest blokowane przez antagonistów receptorów dopaminowych D1 i D2 ( Schroeder i Packard, 2000 ). Jednakże, w przeciwieństwie do innych narkotyków, nasze badania na chomikach sugerują, że testosteron nie indukuje uwalniania DA przez Acb ( Triemstra, Sato i Wood, w druku ). Podobnie, badania na samcach szczurów pokazują, że androgeny nie mają wpływu na podstawowe poziomy DA ani na uwalnianie DA stymulowane amfetaminą ( Birgner, Kindlundh-Hogberg, Nyberg i Bergstrom, 2006 ; ale patrz także Clark, Lindenfeld i Gibbons, 1996 ). Ponadto testosteron wywiera stosunkowo niewielki wpływ na poziomy DA w tkance Acb ( Thiblin, Finn, Ross i Stenfors, 1999 ). Dane te sugerują, że chociaż wzmocnienie testosteronem może ostatecznie zmienić aktywność DA w Acb, mechanizmy mogą być inne niż w przypadku kokainy lub innych stymulantów. W związku z tym ostatnie dane sugerują, że przewlekła ekspozycja na SAA może zmieniać wrażliwość na DA poprzez zmianę metabolizmu DA ( Kurling, Kankaanpaa, Ellermaa, Karila i Seppala, 2005 ), poziomów receptorów DA ( Kindh, Lindblom, Bergstrom, Wikberg i Nyberg, 2001 ; Kindlundh, Lindblom i Nyberg, 2003 ) lub transportera DA ( Kindh, Bergstrom, Monazzam, Hallberg, Blomqvist, Langstrom i Nyberg, 2002 ).
Obecnie nie są znane konkretne sygnały steroidowe, receptory ani miejsca działania testosteronu w mózgu, które odpowiadają za wzmocnienie testosteronu. Na podstawie niedawnych badań chomików przeprowadzonych w naszym laboratorium, wzmacniające działanie testosteronu wydaje się być pośredniczone zarówno przez androgeny, jak i estrogeny ( DiMeo i Wood, 2006 ). Do powszechnie nadużywanych SAA należą zarówno aromatyzowalne, jak i niearomatyzowalne androgeny ( Gallaway, 1997 ; WADA, 2006 ). Oznacza to, że zarówno receptory AR, jak i receptory estrogenowe (ER) mogą transdukować bodźce steroidowe w celu uzyskania nagrody. Istnieje również możliwość, że wzmocnienie testosteronem może być pośredniczone przez kombinację receptorów klasycznych i niegenomowych.
Kilka linii dowodów wskazuje na działanie receptorów niegenomowych w efektach wzmacniających AAS. Oprócz rzadkiego rozmieszczenia AR w Acb i VTA, przebieg czasowy wzmocnienia androgenami jest szybki (<30 min), a przetwarzanie sygnału przez klasyczny AR może nie być wystarczająco szybkie dla wzmocnienia. W związku z tym, aby przetestować rolę niegenomowego AR we wzmocnieniu AAS, zastosowaliśmy dwie uzupełniające się techniki ( rys. 7 ). W jednym eksperymencie ( Sato, Johansen, Jordan i Wood, 2006 ) pozwoliliśmy szczurom z mutacją feminizacji jąder (Tfm, patrz ten problem) na samodzielne podawanie dihydrotestosteronu (DHT), niearomatyzującego androgenu. Mutacja Tfm znacznie zmniejsza wiązanie ligandu w AR. Niemniej jednak szczury Tfm i ich dzikie rodzeństwo płci męskiej podawały sobie mniej więcej taką samą ilość DHT. To przemawia za niegenomowymi efektami DHT. W kolejnym badaniu określiliśmy, czy samce chomików będą samodzielnie podawać DHT sprzężony z albuminą surowicy bydlęcej (BSA, ryc. 8 , Sato i Wood, 2007 ). Koniugaty DHT-BSA są nieprzepuszczalne dla błony komórkowej, a zatem ich działanie ogranicza się do powierzchni komórki. Chomiki samodzielnie podawały DHT, jak wykazano wcześniej ( DiMeo i Wood, 2006 ). Wykazywały one podobną preferencję dla koniugatów DHT-BSA, ale nie były w stanie samodzielnie podawać BSA.

Rys. 7

Rys. 8
Dane te wskazują na centralną rolę receptorów AR na powierzchni komórki w procesie wzmacniania androgenów. Obecnie dokładna natura takich receptorów nie jest znana. Sugerowano, że androgeny mogą działać na powierzchni komórki poprzez wiązanie się z dedykowanymi receptorami AR na błonie ( Thomas, Dressing, Pang, Berg, Tubbs, Benninghoff i Doughty, 2006 , patrz również ten numer). Może to mieć formę pozajądrowego klasycznego receptora AR, o którym donoszono w hipokampie (Sarkey i in., w tym numerze). Alternatywnie, wcześniejsze badania opisywały również miejsca wiązania steroidów w innych układach neuroprzekaźników. W szczególności, różne hormony steroidowe, w tym SAA, mogą allosterycznie modulować receptor GABA-A ( Henderson, 2007 ; Lambert, Belelli, Peden, Vardy i Peters, 2003 ). Podobnie, neurosteroidy siarczanowane mogą modyfikować aktywność podtypów receptorów N -metylo- D -asparaginowych ( Malayev, Gibbs i Farb, 2002 ). Jest to ważny obszar przyszłych badań.
Dlaczego powinna istnieć membrana AR? Jak omówiono wcześniej, istnieje ścisły związek między wydzielaniem androgenu a nagradzającymi zachowaniami społecznymi. Możemy spekulować, że wzrost wydzielania testosteronu następujący po kryciu lub walce służy wzmocnieniu zachowania. Jeśli tak, konieczne jest szybkie połączenie bodźca (zachowania) i nagrody (testosteronu). Można to najlepiej osiągnąć poprzez wiązanie z membraną AR. W związku z tym interesujące byłoby określenie, czy zaciśnięcie wydzielania androgenu podczas krycia zmniejsza nagradzające skutki zachowań seksualnych.
Podsumowanie
Tutaj przeglądamy dowody na to, że androgeny są silnymi mediatorami zachowań motywowanych dorosłymi, a ponadto, że czas narażenia na androgeny podczas programów rozwojowych jest zależny od androgenów w dorosłym życiu. Sterydy anaboliczne szybko stają się ulubionym narkotykiem nadużywanym przez młodzież w USA. Chociaż AAS może nie mieć uzależniającej mocy kokainy lub heroiny, dopiero zaczynamy rozumieć potencjał wzmacniania androgenów. W szczególności, gdy sporty młodzieżowe stają się bardziej konkurencyjne, rośnie presja na rozwój sportowców do stosowania sterydów, począwszy od młodszego wieku. Ten trend jest niepokojący z uwagi na nowe dowody na dojrzewanie neuronów wrażliwych na steroidy u młodzieży.
Pomimo zwiększonej świadomości zarówno opinii publicznej, jak i społeczności naukowej na temat głębokich zmian neuronalnych towarzyszących okresowi dojrzewania, badania eksperymentalne dotyczące neurobiologii rozwojowej dojrzewania są ograniczone. Potrzebne są zwierzęce modele rozwoju nastolatków, aby zbadać, w jaki sposób czas ekspozycji na hormony w trakcie rozwoju zwiększa ryzyko wystąpienia psychopatologii i używania narkotyków u danej osoby oraz jakie rodzaje doświadczeń łagodzą lub wzmacniają behawioralne skutki odchyleń w czasie dojrzewania. Na przykład czynniki społeczne, takie jak wpływ rówieśników, nasilają skutki czasu dojrzewania na używanie substancji psychoaktywnych i alkoholu ( Biehl, Natsuaki i Ge, 2007 ; Patton, Novy, Lee i Hickok, 2004 ; Simons-Morton i Haynie, 2003 ; Wichstrom i Pedersen, 2001 ). Zwierzęce modele czasu dojrzewania będą również stanowić podstawę badań prowadzonych na ludziach i potencjalnie doprowadzą do skuteczniejszych interwencji terapeutycznych w okresie dojrzewania.
Podziękowanie
Dziękujemy Eleni Antzoulatos, Cortney Ballard, Lucy Chu, Kelly Peters, Jennifer Triemstra, Jane Venier, Lisy Rogers i Pameli Montalto za pomoc w tych badaniach. Ta praca jest wspierana przez granty z NIH (DA12843 na RIW, MH68764 na CLS i MH070125 na KMS).
Przypisy
Zastrzeżenie wydawcy: To jest plik PDF nieedytowanego manuskryptu, który został zaakceptowany do publikacji. W ramach usługi dla naszych klientów udostępniamy tę wczesną wersję manuskryptu. Manuskrypt zostanie poddany redakcji, składowi i weryfikacji korekty przed publikacją w ostatecznej, możliwej do cytowania formie. Należy pamiętać, że w trakcie procesu produkcyjnego mogą zostać wykryte błędy, które mogą wpłynąć na treść, w związku z czym obowiązują wszystkie zastrzeżenia prawne dotyczące czasopisma.
Referencje
- Alexander GM, Packard MG, Hines M. Testosteron ma satysfakcjonujące właściwości afektywne u samców szczurów: implikacje dla biologicznych podstaw motywacji seksualnej. Behawioralna neuronauka. 1994;108: 424-8. [PubMed]
- Andersen SL. Trajektorie rozwoju mózgu: punkt wrażliwości lub szansa? Neuroscience & Biobehavioral Reviews. 2003;27: 3-18. [PubMed]
- Andersen SL, Rutstein M, Benzo JM, Hostetter JC, Teicher MH. Różnice płci w nadprodukcji i eliminacji receptora dopaminy. Neuroreport. 1997;8: 1495-8. [PubMed]
- Arnedo MT, Salvador A, Martinez-Sanchis S, Gonzalez-Bono E. Nagradzające właściwości testosteronu u nietkniętych samców myszy: badanie pilotażowe. Farmakologia, biochemia i zachowanie. 2000;65: 327-32.
- Arnedo MT, Salvador A, Martinez-Sanchis S, Pellicer O. Podobne nagradzające efekty testosteronu u myszy oceniono jako krótkie i długie opóźnienia ataku. Biologia uzależnień. 2002;7: 373-9. [PubMed]
- Arnold AP, Breedlove SM. Organizacyjny i aktywizujący wpływ steroidów płciowych na mózg i zachowanie: reanaliza. Hormony i zachowanie. 1985;19: 469-98. [PubMed]
- Benes FM, Taylor JB, Cunningham MC. Zbieżność i plastyczność układów monoaminergicznych w przyśrodkowej korze przedczołowej w okresie poporodowym: implikacje dla rozwoju psychopatologii. Kora mózgowa. 2000;10: 1014-27. [PubMed]
- Benes FM, Turtle M, Khan Y, Farol P. Mielinizacja kluczowej strefy przekaźnikowej w formacji hipokampa zachodzi w mózgu człowieka w dzieciństwie, okresie dojrzewania i dorosłości. Archiwa Psychiatrii Ogólnej. 1994;51: 477-84. [PubMed]
- Biehl MC, Natsuaki MN, Ge XJ. Wpływ czasu dojrzewania na spożywanie alkoholu i ciężkie trajektorie picia. Journal of Youth and Adolescence. 2007;36: 153-167.
- Birgner C, Kindlundh-Hogberg AM, Nyberg F, Bergstrom L. Neuroscience Letters. 2006. Zmienione pozakomórkowe poziomy DOPAC i HVA w jądrze szczura accumbens w odpowiedzi na podchroniczne podawanie nandrolonu i późniejsze prowokowanie amfetaminą.
- Bond AJ, Choi PY, Papież HG., Jr Ocena nastawienia uwagi i nastroju u użytkowników i nieużytkujących sterydów anaboliczno-androgennych. Uzależnienie od narkotyków i alkoholu. 1995;37: 241-5. [PubMed]
- Brower KJ. Nadużywanie i uzależnienie od steroidów anabolicznych. Aktualne raporty psychiatryczne. 2002;4: 377-87. [PubMed]
- Brower KJ, Catlin DH, Blow FC, Eliopulos GA, Beresford TP. Ocena kliniczna i badanie moczu pod kątem nadużywania i uzależnienia od steroidów anaboliczno-androgennych. American Journal of Drug & Alcohol Abuse. 1991;17: 161-171. [PubMed]
- Celotti F, Negri-Cesi P, Poletti A. Metabolizm steroidów w mózgu ssaków: redukcja 5alpha i aromatyzacja. Brain Research Bulletin. 1997;44: 365-75. [PubMed]
- Chung WC, De Vries GJ, Swaab DF. Różnicowanie płciowe jądra łóżkowego terminala u ludzi może rozciągać się na dorosłość. Journal of Neuroscience. 2002;22: 1027-33. [PubMed]
- Clark AS, Henderson LP. Reakcje behawioralne i fizjologiczne na steroidy anaboliczno-androgenne. Neuroscience & Biobehavioral Reviews. 2003;27: 413-36. [PubMed]
- Clark AS, Lindenfeld RC, Gibbons CH. Sterydy anaboliczno-androgenne i nagroda za mózg. Farmakologia, biochemia i zachowanie. 1996;53: 741-5.
- Conacher GN, Workman DG. Gwałtowne przestępstwa związane prawdopodobnie z użyciem sterydów anabolicznych American Journal of Psychiatry. 1989;146: 679. [PubMed]
- Cunningham RL, McGinnis MY. Fizyczna prowokacja szczurów płci męskiej narażonych na dojrzewanie płciowe steroidów anaboliczno-androgennych wywołuje agresję wobec kobiet. Hormony i zachowanie. 2006;50: 410-6. [PubMed]
- Daly RC, Su TP, Schmidt PJ, Pickar D, Murphy DL, Rubinow DR. Płyn mózgowo-rdzeniowy i zmiany behawioralne po podaniu metylotestosteronu: wstępne wyniki. Archiwa Psychiatrii Ogólnej. 2001;58: 172-7. [PubMed]
- Davis EC, Shryne JE, Gorski RA. Strukturalne dymorfizmy płciowe w przednio-centralnym jądrze okołokomorowym podwzgórza szczura są wrażliwe na sterydy gonadalne okołoporodowo, ale rozwijają się obwodowo. Neuroendokrynologia. 1996;63: 142-8. [PubMed]
- de Beun R, Jansen E, Slangen JL, Van de Poll NE. Testosteron jako bodziec apetyczny i dyskryminujący u szczurów: efekty zależne od płci i dawki. Fizjologia i zachowanie. 1992;52: 629-34. [PubMed]
- Dekaban AS. Zmiany w masie mózgu w okresie życia ludzkiego: stosunek wag mózgu do wysokości ciała i masy ciała. Annals of Neurology. 1978;4: 345-56. [PubMed]
- Di Chiara G, Imperato A. Leki nadużywane przez ludzi preferencyjnie zwiększają stężenia synaptycznej dopaminy w mezolimbicznym systemie swobodnie poruszających się szczurów. Postępowanie Narodowej Akademii Nauk Stanów Zjednoczonych Ameryki. 1988;85: 5274-8. [Artykuł bezpłatny PMC] [PubMed]
- DiMeo AN, Wood RI. Samo podawanie estrogenu i dihydrotestosteronu u samców chomików. Hormony i zachowanie. 2006;49: 519-26. [PubMed]
- DiPasquale M. Sterydy anaboliczne. W: Tarter RE, Ammerman RT, Ott PJ, redaktorzy. Podręcznik nadużywania substancji. Prasa plenum; NY: 1998. str. 547 – 565.
- Dominguez J, Riolo JV, Xu Z, Hull EM. Regulacja przez przyśrodkowe ciało migdałowate kopulacji i przyśrodkowe preoptyczne uwalnianie dopaminy. Journal of Neuroscience. 2001;21: 349-355. [PubMed]
- Dominguez JM, Hull EM. Stymulacja przyśrodkowego ciała migdałowatego zwiększa przyśrodkowe przedoptowe uwalnianie dopaminy: implikacje dla zachowań seksualnych samców szczura. Brain Research. 2001;917: 225-229. [PubMed]
- Du J, Lorrain DS, Hull EM. Kastracja zmniejsza pozakomórkową, ale zwiększa wewnątrzkomórkową dopaminę w środkowym obszarze przedbłonowym samców szczurów. Brain Research. 1998;782: 11-17. [PubMed]
- Eckenhoff MF, Rakic P. Natura i los komórek proliferacyjnych w zakręcie zębatym hipokampa w okresie życia małpy rezus. Journal of Neuroscience. 1988;8: 2729-47. [PubMed]
- Everitt BJ, Stacey P. Badania zachowania instrumentalnego ze wzmocnieniem seksualnym u samców szczurów (Rattus norvegicus): II. Skutki zmian przedrakowych, kastracji i testosteronu. Journal of Comparative Psychology. 1987;101: 407-19. [PubMed]
- Gallaway S. Biblia steroidowa. Belle International Press; Sacramento, CA: 1997.
- Galligani N, Renck A, Hansen S. Profil osobowości mężczyzn stosujących sterydy anaboliczno-androgenne. Hormony i zachowanie. 1996;30: 170-5. [PubMed]
- Grimes JM, Melloni RH., Jr Przedłużone zmiany w układzie nerwowym serotoniny po ustaniu młodzieńczej anaboliczno-androgennej ekspozycji steroidowej u chomików (Mesocricetus auratus) Behawioralna neuronauka. 2006;120: 1242-51. [PubMed]
- Hannan CJ, Jr, Friedl KE, Zold A, Kettler TM, Plymate SR. Zmiany psychiczne i kwas homowanilinowy w surowicy u mężczyzn, którym podawano steroidy androgenne. Psychoneuroendocrinology. 1991;16: 335-43. [PubMed]
- Harrison RJ, Connor DF, Nowak C, Nash K, Melloni Rh. Psychoneuroendocrinology. 2000;25: 317-38. [PubMed]
- He J, Crews FT. Neurogeneza zmniejsza się podczas dojrzewania mózgu od okresu dojrzewania do dorosłości. Farmakologia, biochemia i zachowanie. 2007;86: 327-33.
- Henderson LP. Modulacja steroidowa transmisji za pośrednictwem receptora GABAA w podwzgórzu: wpływ na funkcje rozrodcze. Neuropharmacology. 2007;52: 1439-53. [Artykuł bezpłatny PMC] [PubMed]
- Hull EM, Du J, Lorrain DS, Matuszewich L. Pozakomórkowa dopamina w obszarze przyśrodkowym: implikacje dla motywacji seksualnej i hormonalnej kontroli kopulacji. Journal of Neuroscience. 1995;15: 7465-7471. [PubMed]
- Hull EM, Meisel RL, Sachs BD. Męskie zachowania seksualne. W: Pfaff DW, Arnold AP, Etgen AM, Fahrbach SE, Rubin RT, redaktorzy. Hormony, mózg i zachowanie. Academic Press; Nowy Jork: 2002. str. 3 – 137.
- Hull EM, Wood RI, McKenna KE. Neurobiologia zachowań seksualnych mężczyzn. W: Neill JD, redaktor. Fizjologia reprodukcji. Vol. 1. Elsevier Press; Nowy Jork: 2006. str. 1729 – 1824.
- Huttenlocher PR, Dabholkar AS. Regionalne różnice w synaptogenezie w korze mózgowej człowieka. Journal of Comparative Neurology. 1997;387: 167-78. [PubMed]
- Johnson LR, Wood RI. Samosterowanie doustnym testosteronem u samców chomików. Neuroendokrynologia. 2001;73: 285-92. [PubMed]
- Johnston LD, O'Malley PM, Bachman JG. Uczniowie szkół średnich (publikacja NIH nr 03 – 5375) I. Bethesda, MD: National Institute on Drug Abuse; 2003. Monitorowanie przyszłych wyników badań krajowych dotyczących zażywania narkotyków, 1975 – 2002.
- Kaiser Family Foundation. Aktywność seksualna nastolatków w USA. 2005. str. # 3040 – 02.
- Kashon ML, Hayes MJ, Shek PP, Sisk CL. Regulacja immunoreaktywności receptora androgenowego w mózgu przez androgen u samców fretek przed okresem dojrzewania. Biologia reprodukcji. 1995;52: 1198-205. [PubMed]
- Kindlundh AM, Bergstrom M, Monazzam A, Hallberg M, Blomqvist G, Langstrom B, Nyberg F. Dopaminergiczne efekty po przewlekłym leczeniu nandrolonem uwidocznionym w mózgu szczura przez pozytronową tomografię emisyjną. Postęp w NeuroPsychopharmacology & Biological Psychiatry. 2002;26: 1303-8.
- Kindlundh AM, Lindblom J, Bergstrom L, Wikberg JE, Nyberg F. Anaboliczno-androgenny steroidowy dekanian nandrolonu wpływa na gęstość receptorów dopaminy w męskim mózgu szczura. European Journal of Neuroscience. 2001;13: 291-6. [PubMed]
- Kindlundh AM, Lindblom J, Nyberg F. Przewlekłe podawanie dekanianu nandrolonu indukuje zmiany w zawartości transkryptu genu receptorów dopaminy D (1) i D (2) w mózgu szczura. Brain Research. 2003;979: 37-42. [PubMed]
- King BE, Packard MG, Alexander GM. Właściwości afektywne zastrzyków testosteronu w obrębie śródśrodkowego obszaru przedbłonkowego u samców szczurów. Neuroscience Letters. 1999;269: 149-52. [PubMed]
- Koob GF, Nestler EJ. Neurobiologia uzależnienia od narkotyków. Journal of Neuropsychiatry & Clinical Neurosciences. 1997;9: 482-97. [PubMed]
- Kouri EM, Lukas SE, Papież HG, Jr, Oliva PS. Zwiększona agresywna odpowiedź u ochotników płci męskiej po podaniu stopniowo rosnących dawek cypionianu testosteronu. Uzależnienie od narkotyków i alkoholu. 1995;40: 73-9. [PubMed]
- Kritzer MF. Długotrwała gonadektomia wpływa na gęstość aksonów hydroksylazy tyrozynowej, ale nie aksonów immunoreaktywnych na beta-hydroksylazę, dopaminę lub serotoninę w środkowej przedczołowej korze dorosłych samców szczurów. Kora mózgowa. 2003;13: 282-296. [PubMed]
- Kurling S, Kankaanpaa A, Ellermaa S, Karila T, Seppala T. Wpływ leczenia przewlekłym dekanianem nandrolonu na układy neuronalne dopaminergiczne i serotoninergiczne w mózgach szczurów. Brain Research. 2005;1044: 67-75. [PubMed]
- Lambert JJ, Belelli D, Peden DR, Vardy AW, Peters JA. Modulacja neurosteroidowa receptorów GABAA. Postęp w neurobiologii. 2003;71: 67-80. [PubMed]
- Lenroot RK, Giedd JN. Rozwój mózgu u dzieci i młodzieży: wnioski z anatomicznego obrazowania metodą rezonansu magnetycznego. Neuroscience & Biobehavioral Review. 2006;30: 718-29.
- Lesting J, Neddens J, Teuchert-Noodt G. Ontogeneza unerwienia dopaminy w jądrze półleżącym myszoskoczków. Brain Research. 2005;1066: 16-23. [PubMed]
- Malayev A, Gibbs TT, Farb DH. Hamowanie odpowiedzi NMDA przez siarczan pregnenolonu ujawnia selektywną modulację podtypów receptorów NMDA przez siarczanowane steroidy. British Journal of Pharmacology. 2002;135: 901-9. [Artykuł bezpłatny PMC] [PubMed]
- Martinez M, Guillen-Salazar F, Salvador A, Simon VM. Skuteczna agresja intermale i warunkowa preferencja miejsca u myszy. Fizjologia i zachowanie. 1995;58: 323-8. [PubMed]
- Meek LR, Romeo RD, Novak CM, Sisk CL. Działania testosteronu u samców chomika przed okresem dojrzewania i po urodzeniu: rozłączenie wpływu na zachowanie reprodukcyjne i immunoreaktywność receptora androgenowego w mózgu. Hormony i zachowania. 1997;31: 75-88.
- Meisel RL, Joppa MA. Warunkowe preferencje dotyczące miejsca u samic chomików po agresywnych lub seksualnych spotkaniach. Fizjologia i zachowanie. 1994;56: 1115-8. [PubMed]
- Melloni RH, Jr, Connor DF, Hang PT, Harrison RJ, Ferris CF. Anaboliczne działanie androgenne steroidów w okresie dojrzewania i agresywne zachowanie u złotych chomików. Fizjologia i zachowanie. 1997;61: 359-64. [PubMed]
- Menard C, Harlan R. Zwiększona regulacja immunoreaktywności receptora androgenowego w mózgu szczura przez sterydy androgenowo-anaboliczne. Brain Research. 1993;622: 226-236. [PubMed]
- Mermelstein PG, Becker JB, Surmeier DJ. Estradiol zmniejsza prądy wapnia w neuronach prążkowia szczura przez receptor błonowy. Journal of Neuroscience. 1996;16: 595-604. [PubMed]
- Midgley SJ, Heather N, Davies JB. Poziom agresji wśród grupy użytkowników sterydów anaboliczno-androgennych. Medycyna, nauka i prawo. 2001;41: 309-14.
- Molenda-Figueira HN, Salas-Ramirez KY, Schulz KM, Zehr JL, Montalto PR, Sisk CL. Doświadczenie społeczne młodzieży przywraca zachowanie wytrysku u dorosłych chomików syryjskich pozbawionych dojrzewania testosteronu. Towarzystwo Neuroendokrynologii Behawioralnej; Pacific Grove, CA: 2007.
- Szlachetny RG, Alsum PB. Hormonalne zależne od płci dymorfizmy u złotego chomika (Mesocricetus auratus) Fizjologia i zachowanie. 1975;14: 567-74. [PubMed]
- Nunez JL, Lauschke DM, Juraska JM. Śmierć komórek w rozwoju kory tylnej u samców i samic szczurów. Journal of Comparative Neurology. 2001;436: 32-41. [PubMed]
- Nunez JL, Sodhi J, Juraska JM. Hormony jajników po urodzeniu 20 zmniejszają liczbę neuronów w pierwotnej korze wzrokowej szczura. Journal of Neurobiology. 2002;52: 312-21. [PubMed]
- O'Connor DB, Archer J, Wu FC. Wpływ testosteronu na nastrój, agresję i zachowania seksualne u młodych mężczyzn: podwójnie ślepe, kontrolowane placebo, badanie krzyżowe. Journal of Clinical Endocrinology & Metabolism. 2004;89: 2837-45. [PubMed]
- Packard MG, Cornell AH, Alexander GM. Nagradzające właściwości afektywne zastrzyków testosteronu wewnątrz jądra półleżącego. Behawioralna neuronauka. 1997;111: 219-24. [PubMed]
- Parfitt DB, Thompson RC, Richardson HN, Romeo RD, Sisk CL. MRNA GnRH zwiększa się wraz z dojrzewaniem w męskim mózgu chomika syryjskiego. Journal of Neuroendocrinology. 1999;11: 621-7. [PubMed]
- Parrott AC, Choi PY, Davies M. Stosowanie steroidów anabolicznych przez sportowców amatorów: wpływ na psychiczne stany nastroju. Journal of Sports Medicine & Physical Fitness. 1994;34: 292-8. [PubMed]
- Patton PE, Novy MJ, Lee DM, Hickok LR. Rozpoznanie i wynik rozrodczy po chirurgicznym leczeniu pełnej przegrodowej macicy, powielonej szyjki macicy i przegrody pochwy. American Journal of Obstetrics & Gynecology. 2004;190: 1669 – 75. 1675 – 8. [PubMed]
- Paus T, Collins DL, Evans AC, Leonard G, Pike B, Zijdenbos A. Dojrzewanie istoty białej w mózgu człowieka: przegląd badań rezonansu magnetycznego. Brain Research Bulletin. 2001;54: 255-66. [PubMed]
- Perry PJ, Kutscher EC, Lund BC, Yates WR, Holman TL, Demers L. Miary agresji i zmian nastroju u mężczyzn ciężarowców z androgennym sterydem anabolicznym i bez niego. Journal of Forensic Sciences. 2003;48: 646-51. [PubMed]
- Peters KD, Wood RI. Zależność androgenów u chomików: przedawkowanie, tolerancja i potencjalne mechanizmy opioidergiczne. Neuronauka. 2005;130: 971-81. [PubMed]
- Pfaus JG, Damsma G, Nomikos GG, Wenkstern DG, Blaha CD, Phillips AG, Fibiger HC. Zachowania seksualne zwiększają centralną transmisję dopaminy u samca szczura. Brain Research. 1990;530: 345-348. [PubMed]
- Phoenix CH, Goy RW, Gerall AA, Young WC. Organizowanie działania prenatalnie podawanego propionianu testosteronu na tkanki, w których pośredniczy zachowanie krycia u samicy świnki morskiej. Endokrynologia. 1959;65: 369-82. [PubMed]
- Pinos H, Collado P, Rodriguez-Zafra M, Rodriguez C, Segovia S, Guillamon A. Rozwój różnic płci w locus coeruleus szczura. Brain Research Bulletin. 2001;56: 73-8. [PubMed]
- Pope HG, Jr, Katz DL. Zabójstwa i bliskie zabójstwa użytkowników sterydów anabolicznych. [Patrz komentarz] Journal of Clinical Psychiatry. 1990;51: 28-31. [PubMed]
- Pope HG, Jr, Katz DL. Psychiatryczne i medyczne skutki stosowania sterydów anaboliczno-androgennych. Kontrolowane badanie sportowców 160. Archiwa Psychiatrii Ogólnej. 1994;51: 375-82. [PubMed]
- Pope HG, Jr, Kouri EM, Powell KF, Campbell C, Katz DL. Stosowanie anaboliczno-androgennych steroidów wśród więźniów 133. Kompleksowa psychiatria. 1996;37: 322-7. [PubMed]
- Putnam SK, Du J, Sato S, Hull EM. Przywrócenie testosteronu zachowania kopulacyjnego koreluje z przyśrodkowym preoptycznym uwalnianiem dopaminy u kastrowanych samców szczurów. Hormony i zachowanie. 2001;39: 216-224. [PubMed]
- Putnam SK, Sato S, Hull EM. Wpływ metabolitów testosteronu na kopulację i przyśrodkowe uwalnianie dopaminy u kastrowanych samców szczurów. Hormony i zachowanie. 2003;44: 419-26. [PubMed]
- Putnam SK, Sato S, Riolo JV, Hull EM. Wpływ metabolitów testosteronu na kopulację, przyśrodkową dopaminę dopaminową i immunoreaktywność NOS u wykastrowanych samców szczurów. Hormony i zachowanie. 2005;47: 513-522. [PubMed]
- Rankin SL, Partlow GD, McCurdy RD, Giles ED, Fisher KR. Po urodzeniu neurogeneza wazopresyny i jądra zawierającego oksytocynę podwzgórza świni. Brain Research. 2003;971: 189-96. [PubMed]
- Ricci LA, Rasakham K, Grimes JM, Melloni RH., Aktywność i ekspresja receptora Jr Serotoniny-1A modulują u chomików agresję anaboliczną / androgenną wywołaną steroidami u młodzieży. Farmakologia, biochemia i zachowanie. 2006;85: 1-11.
- Romeo RD, Cook-Wiens E, Richardson HN, Sisk CL. Dihydrotestosteron aktywuje zachowania seksualne u dorosłych samców chomików, ale nie u młodych osobników. Fizjologia i zachowanie. 2001;73: 579-84. [PubMed]
- Romeo RD, Diedrich SL, Sisk CL. Immunoreaktywność receptora estrogenowego u przedwczesnych i dorosłych samców chomików syryjskich. Neuroscience Letters. 1999;265: 167-70. [PubMed]
- Romeo RD, Parfitt DB, Richardson HN, Sisk CL. Feromony wywołują równoważne poziomy immunoreaktywności Fos u przedwczesnych i dorosłych samców chomików syryjskich. Hormony i zachowanie. 1998;34: 48-55. [PubMed]
- Romeo RD, Richardson HN, Sisk CL. Dojrzewanie i dojrzewanie męskiego mózgu i zachowania seksualne: przekształcenie potencjału behawioralnego. Neuroscience & Biobehavioral Reviews. 2002a;26: 381-91. [PubMed]
- Romeo RD, Wagner CK, Jansen HT, Diedrich SL, Sisk CL. Estradiol indukuje receptory progesteronu podwzgórza, ale nie aktywuje zachowania krycia u samców chomików (Mesocricetus auratus) przed okresem dojrzewania. Behawioralna neuronauka. 2002b;116: 198-205. [PubMed]
- Salas-Ramirez KY, Montalto PR, Sisk CL. Sterydy anaboliczno-androgenne (AAS) różnie wpływają na zachowania społeczne u młodzieńców i dorosłych chomików syryjskich. Hormony i zachowanie. 2008 w prasie.
- SAMHSA / OAS. Publikacja DHHS nr (SMA) 1996. 1994 Krajowe badanie gospodarstw domowych na temat nadużywania narkotyków, główne ustalenia 1994; str. 96 – 3085.
- SAMHSA / OAS. Wyniki krajowego badania 2004 dotyczącego używania narkotyków i zdrowia: wyniki krajowe. 2005. Seria NSDUH H-28, publikacja DHHS nr SMA 05 – 4062.
- Sato SM, Johansen J, Jordan CL, Wood RI. Samo podawanie androgenów u szczurów Tfm. 10th Doroczne spotkanie Society for Behavioral Neuroendocrinology.2006.
- Sato SM, Wood RI. Samodzielne podawanie nieprzepuszczalnych dla błon steroidów anaboliczno-androgennych (aas) u chomików syryjskich. 11th Doroczne spotkanie Society of Behavioral Neuroendocrinology.2007.
- Schroeder JP, Packard MG. Rola podtypów receptora dopaminy w nabywaniu preferencji miejsca warunkowanej testosteronem u szczurów. Neuroscience Letters. 2000;282: 17-20. [PubMed]
- Schulte HM, Hall MJ, Boyer M. Przemoc domowa związana z nadużywaniem sterydów anabolicznych. American Journal of Psychiatry. 1993;150: 348. [PubMed]
- Schulz KM, Menard TA, Smith DA, Albers HE, Sisk CL. Ekspozycja na hormony jąder w okresie dojrzewania organizuje zachowanie oznakowania bocznego i wiązanie receptora wazopresyny w przegrodzie bocznej. Hormony i zachowanie. 2006;50: 477-83. [PubMed]
- Schulz KM, Richardson HN, Romeo RD, Morris JA, Lookingland KJ, Sisk CL. W okresie dojrzewania płciowego u samców chomika syryjskiego pojawiają się reakcje dopaminergiczne okolicy przedostrej przyśrodkowej na feromony żeńskie. Brain Research. 2003;988: 139-45. [PubMed]
- Schulz KM, Richardson HN, Zehr JL, Osetek AJ, Menard TA, Sisk CL. W męskim chomiku syryjskim hormony gonadalne maskulinizują i rozmiękczają zachowania reprodukcyjne w okresie dojrzewania. Hormony i zachowanie. 2004;45: 242-9. [PubMed]
- Schulz KM, Sisk CL. Hormony dojrzewania, mózg młodzieńczy i dojrzewanie zachowań społecznych: Lekcje z chomika syryjskiego. Endokrynologia molekularna i komórkowa. 2006:254–255. 120–6.
- Schulz KM, Zehr JL, Salas-Ramirez KY, Sisk CL. Neuroscience Meeting Planner. Sandiego, CA: Society for Neuroscience; 2007. Czy okres dojrzewania jest drugim wrażliwym okresem dla organizującego wpływu testosteronu na zachowanie reprodukcyjne dorosłych mężczyzn? 2007 Online.
- Scott JP, Stewart JM, De Ghett VJ. Krytyczne okresy w organizacji systemów. Psychobiologia rozwojowa. 1974;7: 489-513. [PubMed]
- Shughrue PJ, Lane MV, Merchenthaler I. Porównawczy rozkład receptora estrogenowego-alfa i-beta mRNA w centralnym układzie nerwowym szczura. Journal of Comparative Neurology. 1997;388: 507-25. [PubMed]
- Simons-Morton BG, Haynie DL. Psychospołeczne predyktory wzmożonej fazy palenia wśród szóstoklasistów. American Journal of Health Behavior. 2003;27: 592-602. [PubMed]
- Sisk CL, Zehr JL. Hormony dojrzewania organizują mózg i zachowanie nastolatków. Granice w neuroendokrynologii. 2005;26: 163-74. [PubMed]
- Sowell ER, Thompson PM, Leonard CM, Welcome SE, Kan E, Toga AW. Mapowanie podłużne grubości korowej i wzrostu mózgu u normalnych dzieci. Journal of Neuroscience. 2004;24: 8223-31. [PubMed]
- Sowell ER, Thompson PM, Tessner KD, Toga AW. Mapowanie kontynuacji wzrostu mózgu i redukcji gęstości istoty szarej w korze czołowej grzbietowej: odwrotne zależności podczas dojrzewania mózgu po urodzeniu. Journal of Neuroscience. 2001;21: 8819-29. [PubMed]
- Spear LP. Młodzieżowy mózg i związane z wiekiem objawy behawioralne. Neuroscience & Biobehavioral Review. 2000;24: 417-63.
- Su TP, Pagliaro M, Schmidt PJ, Pickar D, Wolkowitz O, Rubinow DR. Neuropsychiatryczne działanie sterydów anabolicznych u mężczyzn zdrowych ochotników. JAMA. 1993;269: 2760-4. [PubMed]
- Thiblin I, Finn A, Ross SB, Stenfors C. Zwiększone aktywności dopaminergiczne i 5-hydroksytryptaminergiczne w męskim mózgu szczura po długotrwałym leczeniu steroidami anaboliczno-androgennymi. British Journal of Pharmacology. 1999;126: 1301-6. [Artykuł bezpłatny PMC] [PubMed]
- Thomas P, Dressing G, Pang Y, Berg H, Tubbs C, Benninghoff A, Doughty K. Progestin, estrogeny i androgeny sprzężone z białkami G w gonadach ryb. Steroidy. 2006;71: 310-6. [PubMed]
- Tricker R., Casaburi R, Storer TW, Clevenger B, Berman N, Shirazi A, Bhasin S. Journal of Clinical Endocrinology & Metabolism. 1996;81: 3754-8. [PubMed]
- Triemstra JL, Nagatani S, Wood RI. Sygnały chemosensoryczne są niezbędne do wywołanego parowania uwalniania dopaminy w MPOA samców chomików syryjskich. Neuropsychopharmacology. 2005;30: 1436-42. [PubMed]
- Triemstra JL, Sato SM, Wood RI. Testosteron i jądro nabierają dopaminy w męskim chomiku syryjskim. Psychoneuroendocrinology (w prasie)
- Van Eenoo P, Delbeke FT. Rozpowszechnienie dopingu we Flandrii w porównaniu z rozpowszechnieniem dopingu w sportach międzynarodowych. International Journal of Sports Medicine. 2003;24: 565-570. [PubMed]
- WADA. Niekorzystne wyniki analityczne zgłoszone przez akredytowane laboratoria. 2006. http://www.wada-ama.org.
- Wesson DW, McGinnis MY. Układanie steroidów anaboliczno-androgennych (AAS) w okresie dojrzewania u szczurów: ocena neuroendokrynna i behawioralna. Farmakologia, biochemia i zachowanie. 2006;83: 410-9.
- Wichstrom L, Pedersen W. Stosowanie sterydów anaboliczno-androgennych w okresie dojrzewania: wygrywanie, wyglądanie dobrze lub bycie złym? Journal of Studies on Alcohol. 2001;62: 5-13. [PubMed]
- Wood RI, Johnson LR, Chu L, Schad C, Self DW. Wzmocnienie testosteronu: samopodawanie dożylne i do komór mózgowych samców szczurów i chomików. Psychofarmakologia. 2004;171: 298-305. [PubMed]
- Wood RI, Newman SW. Receptory androgenów i estrogenów współistnieją z poszczególnymi neuronami w mózgu chomika syryjskiego. Neuroendokrynologia. 1995;62: 487-97. [PubMed]
- Wood RI, Swann JM. Integracja neuronalna sygnałów chemosensorycznych i hormonalnych, które kontrolują męskie zachowania seksualne. W: Wallen K, Schneider JS, redaktorzy. Reprodukcja w kontekście. MIT Press; Cambridge: 1999. str. 423 – 444.
- Zahm DS, Heimer L. Dwa transpallidalne szlaki pochodzące z jądra półleżącego szczura. Journal of Comparative Neurology. 1990;302: 437-46. [PubMed]