UWAGI: To koreańskie badanie fMRI powiela inne badania mózgu u użytkowników porno. Podobnie jak studia uniwersyteckie w Cambridge, odkrył wzorce aktywacji mózgu wywołane wzorcem u uzależnionych od seksu, które odzwierciedlały schematy narkomanów. Zgodnie z kilkoma badaniami niemieckimi odkrył on zmiany w korze przedczołowej, które pasują do zmian obserwowanych u narkomanów.
Podczas gdy jest to replikacja aspektów innych badań, koreański papier dodaje także:
- Zbadano dodatkowe obszary mózgu biorące udział w reaktywności wywołanej przez cue i stwierdzono, że wszystkie reagowały z dużo większą intensywnością niż w zdrowych kontrolach. Dodatkowe obszary mózgu: wzgórze, jądro lewego jądra ogoniastego, prawy nadraminowy zakręt i prawy grzbietowy zakręt kończyn przednich.
- Nowością jest to, że odkrycia idealnie pasują do wzorców kory przedczołowej obserwowanych u osób uzależnionych od narkotyków: Większa reaktywność sygnałów na obrazy seksualne, ale zahamowana odpowiedź na inne normalne bodźce. U uzależnionego sygnały związane z nałogiem powodują, że kora przedczołowa wysadza obwód nagrody za pomocą sygnałów „idź po to”. Powoduje również mniejsze podekscytowanie w odpowiedzi na normalne codzienne nagrody. Oznacza to, że mniej motywacji do dążenia do normalnych nagród.
Z przodu. Behav. Neurosci., 30 November 2015
- Wydział Psychologii, Instytut Badań Mózgu, Chungnam National University, Daejeon, Korea Południowa
Badania nad cechami osób z zaburzeniami hiperseksualnymi gromadzą się ze względu na rosnące obawy dotyczące problematycznych zachowań hiperseksualnych (PHB). Obecnie stosunkowo niewiele wiadomo na temat behawioralnych i neuronalnych mechanizmów pożądania seksualnego. Nasze badanie miało na celu zbadanie neuronalnych korelatów pożądania seksualnego z funkcjonalnym obrazowaniem metodą rezonansu magnetycznego związanego ze zdarzeniami (fMRI). Dwadzieścia trzy osoby z PHB i 22 dobranymi wiekowo zdrowymi kontrolami zostały przeskanowane podczas biernego oglądania bodźców seksualnych i nieseksualnych. Poziom pożądania seksualnego badanych oceniano w odpowiedzi na każdy bodziec seksualny. W porównaniu z grupą kontrolną osoby z PHB doświadczały częstszego i zwiększonego pożądania seksualnego podczas ekspozycji na bodźce seksualne. Większą aktywację obserwowano w jądrze ogoniastym, płacie ciemieniowym dolnym, zakręcie grzbietowym przednim zakrętu obręczy, wzgórzu i grzbietowo-bocznej korze przedczołowej w grupie PHB niż w grupie kontrolnej. Ponadto wzorce hemodynamiczne w aktywowanych obszarach różniły się między grupami. Zgodnie z wynikami badań obrazowania mózgu uzależnienia od substancji i zachowania, osoby z behawioralnymi cechami PHB i zwiększonym pożądaniem wykazywały zmienioną aktywację w korze przedczołowej i obszarach podkorowych. Podsumowując, nasze wyniki pomogą scharakteryzować zachowania i związane z nimi mechanizmy neuronalne osób z PHB.
Wprowadzenie
Problematyczne zachowania hiperseksualne (PHB) definiuje się jako ciągłe uczestnictwo w powtarzających się aktach seksualnych bez kontroli nad nadmierną kompulsywnością seksualną i zachowaniem, pomimo świadomości powiązanych negatywnych skutków ( Goodman, 1993 ; Carnes, 2001 , 2013 ). Osoby cierpiące na PHB mogą doświadczać skrajnych trudności w relacjach rodzinnych i wydajności w pracy. Ponadto są one bardziej narażone na zakażenie chorobami przenoszonymi drogą płciową lub doświadczenie niechcianej ciąży z powodu rozwiązłych stosunków seksualnych ( Schneider i Schneider, 1991 ; Kuzma i Black, 2008 ). W USA 3–6% studentów społeczności i szkół wyższych ma PHB ( Coleman, 1992 ; Black, 2000 ; Seegers, 2003 ). W Korei około 2% wszystkich studentów ma PHB ( Kim i Kwak, 2011 ). Ze względu na wysoką częstość występowania tej choroby i związane z nią problemy, związane z nią zagrożenia są coraz częściej dostrzegane w społeczeństwie, a zachorowalność na PHB wydaje się rosnąć.
Chociaż poważny charakter zaburzenia hiperseksualizmu jest obecnie znany, nie zostało ono uwzględnione w DSM-5 ( Amerykańskie Towarzystwo Psychiatryczne, 2013 ). Trwają debaty na temat tego, czy zaburzenie hiperseksualne powinno być klasyfikowane jako choroba; w związku z tym nie ma konsensusu co do jego definicji, klasyfikacji ani kryteriów diagnostycznych. Odzwierciedla to trudności w ustaleniu jasnego standardu klasyfikacji, wynikające z braku obiektywnych i empirycznych badań nad czynnikami związanymi z zaburzeniem hiperseksualizmu.
Chociaż klasyfikacja PHB jako choroby jest nadal kontrowersyjna, zaproponowano, aby zaliczyć nadmierną aktywność seksualną do kategorii zaburzeń uzależniających, ponieważ PHB obejmuje objawy podobne do innych form uzależnienia ( Goodman, 2001 ; Kor i in., 2013 ). Wzmocnione pożądanie jest ściśle związane z klinicznie istotnymi aspektami zaburzeń uzależniających. Badania obrazowe wykazały, że funkcja obszarów mózgu zaangażowanych w pożądanie jest zmieniona u osób uzależnionych od substancji ( Garavan i in., 2000 ; Tapert i in., 2003 ; Franklin i in., 2007 ; McClernon i in., 2009 ). Uzależnienia behawioralne, takie jak hazard, gry internetowe i zachowania seksualne, które nie wiążą się z bezpośrednim przyjmowaniem narkotyków, również wiążą się ze zwiększonym pożądaniem, co wydaje się być powiązane ze zmianami w funkcjach odpowiednich obszarów mózgu ( Crockford i in., 2005 ; Ko i in., 2009 ; Kühn i Gallinat, 2014 ; Voon i in., 2014 ).
Badania obrazowania mózgu dotyczące pożądania w uzależnieniu od substancji i uzależnieniu behawioralnym wykazały zmiany funkcjonalne w korze przedczołowej (PFC) i podkorowych obwodach nagrody u osób z tymi zaburzeniami ( Goldstein i Volkow, 2011 ). W szczególności badania te zidentyfikowały kluczowy udział PFC w uzależnieniu, zarówno poprzez regulację regionów limbicznych nagrody, jak i jej udział w aspektach motywacyjnych powtarzalnego używania substancji i kompulsywnych zachowań. Zaburzone funkcjonowanie PFC prowadzi do upośledzeń w hamowaniu reakcji i atrybucji wyrazistości, takich jak przypisywanie nieodpowiednio nadmiernej wyrazistości uzależniającemu sygnałowi, jak w przypadku substancji i zachowań uzależnionych, oraz zmniejszone pragnienie normalnych bodźców nagradzających ( Goldman-Rakic i Leung, 2002 ; Goldstein i Volkow, 2011 ).
Zgodnie z tymi wynikami, wyniki badania neuroobrazowego dotyczącego zaburzeń seksualnych z popędem płciowym (PHB) sugerują, że osoby z takimi zaburzeniami odczuwają większe subiektywne pożądanie seksualne w porównaniu ze zdrowymi osobami kontrolnymi oraz że zwiększone pożądanie jest związane z odmiennymi wzorcami reakcji neuronalnych w sieci czynnościowej grzbietowo-przedniej obręczy, prążkowia brzusznego i ciała migdałowatego ( Voon i in., 2014 ). W badaniu struktury mózgu i łączności funkcjonalnej Kühn i Gallinat (2014) wykazali, że częsta ekspozycja na pornografię wiąże się ze zmianami w strukturze i funkcjonowaniu mózgu w obszarach kory przedczołowej (PFC) i może prowadzić do tendencji do poszukiwania nowych i bardziej ekstremalnych treści seksualnych.
Badania te dostarczają dowodów na to, że podwyższone pożądanie i nieprawidłowości funkcjonalne związane z pożądaniem są również zaangażowane w PHB, nawet jeśli samo zachowanie nie indukuje efektów neurotoksycznych.
Niestety, dane empiryczne dotyczące odpowiedzi neuronalnych związanych z pożądaniem seksualnym u osób z PHB są niewystarczające. Wcześniejsze badania mechanizmów mózgowych leżących u podstaw przetwarzania pożądania seksualnego u osób z PHB wykorzystywały konwencjonalne paradygmaty blokowe podczas czynnościowego rezonansu magnetycznego (fMRI) i stosunkowo wydłużoną ekspozycję na bodźce erotyczne. W badaniach nad pożądaniem seksualnym czas trwania prezentacji wydaje się być istotny z metodologicznego punktu widzenia i ze względu na różnice w przetwarzaniu informacji ( Bühler i in., 2008 ). W projektach blokowych czas trwania prezentacji bodźca jest wydłużony, a występowanie ciągłych bodźców w bloku jest całkowicie przewidywalne ( Zarahn i in., 1997 ). Dlatego projekty blokowe prawdopodobnie aktywują obszary związane z procesami poznawczymi, takimi jak podtrzymywana uwaga, kontrola odgórna i hamowanie podniecenia seksualnego . Może to prowadzić do zmniejszenia zaangażowania emocjonalnego, a tym samym zmiany leżącej u podstaw aktywności neuronalnej ( Schafer i in., 2005 ). Z metodologicznego punktu widzenia projekty oparte na zdarzeniach są gorsze od konwencjonalnych projektów blokowych pod względem wykrywania aktywowanych obszarów mózgu, są natomiast lepsze pod względem szacowania funkcji odpowiedzi hemodynamicznej ( Birn i in., 2002 ).
Dlatego celem tego badania było
(1) powiela poprzednie wyniki behawioralne podwyższonego pożądania seksualnego u osób z PHB,
(2) identyfikuje zmiany w funkcjonowaniu mózgu w regionach, o których wiadomo, że są związane ze zwiększonym pożądaniem, oraz
(3) zrozumieć różnice w odpowiedziach hemodynamicznych tych obszarów mózgu w czasie u osób z PHB za pomocą związanych z wydarzeniem fMRI.
Postawiliśmy hipotezę, że osoby z PHB częściej wykazują większe pożądanie seksualne w porównaniu ze zdrowymi kontrolami, a regiony mózgu, takie jak PFC i podkorowe obwody nagrody, wykazują zmienioną aktywność i odpowiedzi hemodynamiczne w porównaniu ze zdrowymi kontrolami.
Metody
Zarejestrowanych
W niniejszym badaniu wzięło udział 23 heteroseksualnych uczestników płci męskiej z grupy PHB [średni wiek = 26.12, odchylenie standardowe (SD) = 4.11 lat] i 22 heteroseksualnych uczestników płci męskiej z grupy kontrolnej (średni wiek = 26.27, SD = 3.39 lat) . Około 70 potencjalnych uczestników zostało zrekrutowanych z placówek leczenia problematycznych zachowań seksualnych i spotkań Anonimowych Uzależnień od Seksu . Kryteria włączenia opierały się na kryteriach diagnostycznych PHB z poprzednich badań (Tabela S1; Carnes i in., 2010 ; Kafka, 2010 ). Kryteria wykluczenia były następujące: wiek powyżej 45 lat lub poniżej 18 lat; poważne zaburzenie psychiczne, takie jak zaburzenia związane z używaniem alkoholu, zaburzenia hazardowe, duże zaburzenie depresyjne, choroba afektywna dwubiegunowa lub zaburzenie obsesyjno-kompulsywne; aktualne przyjmowanie leków; historia poważnego urazu głowy; homoseksualizm; karalność; lub niekwalifikowalność do obrazowania (tj. obecność metalu w ciele, ciężki astygmatyzm lub klaustrofobia). Klinicyści przeprowadzili wywiady kliniczne ze wszystkimi potencjalnymi uczestnikami, a ostateczna grupa 23 mężczyzn, którzy spełniali kryteria włączenia, ale nie kryteria wykluczenia, została wybrana do grupy PHB. Do grupy kontrolnej wybrano 22 uczestników o cechach demograficznych (wiek, płeć, poziom wykształcenia i poziom dochodów) odpowiadających grupie PHB. Wszyscy uczestnicy wyrazili pisemną świadomą zgodę po wyjaśnieniu im treści niniejszego badania. Komisja Bioetyczna Uniwersytetu Narodowego Chungnam zatwierdziła procedury eksperymentalne i procedury zgody (numer zatwierdzenia: 201309-SB-003-01). Wszyscy uczestnicy otrzymali wynagrodzenie finansowe (150 dolarów) za udział.
Instrumenty pomiarowe
Uczestnicy wypełnili ankietę zawierającą pytania dotyczące ich cech demograficznych i aktywności seksualnych w ciągu ostatnich 6 miesięcy oraz standaryzowane skale, takie jak Barratt Impulsiveness Scale-11 ( Patton i in., 1995 ), Kwestionariusz Agresji Bussa-Perry'ego ( Buss i Perry, 1992 ), Inwentarz Depresji Becka ( Beck i in., 1996 ), Inwentarz Lęku Becka ( Beck i in., 1996 ), Test Przesiewowy Uzależnienia od Seksu (SAST-R; Carnes i in., 2010 ) oraz Inwentarz Zachowań Hiperseksualnych (HBI; Reid i in., 2011 ; Tabela 1 ). Pytania dotyczące zachowań seksualnych dotyczyły wieku pierwszego stosunku płciowego i obecnego statusu związku seksualnego. Wyłączną sytuację seksualną zdefiniowano jako związek, w którym tylko dwie osoby odbywają stosunek płciowy wyłącznie ze sobą. Niewyłączny związek seksualny zdefiniowano jako utrzymywanie wielu stosunków seksualnych z kilkoma różnymi partnerami seksualnymi, bez zachowania jakiejkolwiek intymności w związku.
TABELA 1
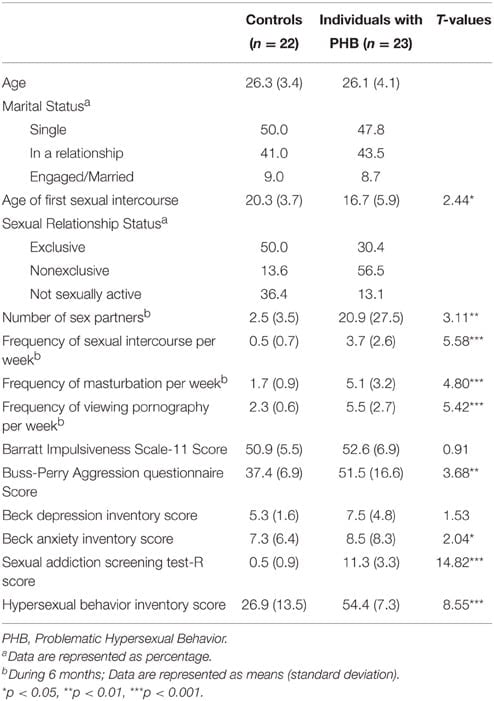
Tabela 1. Charakterystyka podmiotu.
Pytania dotyczące cech związanych z aktywnością seksualną obejmowały częstotliwość stosunków seksualnych w tygodniu, częstotliwość masturbacji w tygodniu, częstotliwość oglądania pornografii w tygodniu i liczbę wszystkich partnerów seksualnych w ciągu ostatnich 6 miesięcy . Ponadto, SAST-R ( Carnes i in., 2010 ) i HBI ( Reid i in., 2011 ) zostały użyte do oceny stopnia PHB u uczestników. SAST-R składa się z 20 pytań mających na celu ocenę stopnia uzależnienia seksualnego. Punktacja mieści się w zakresie od 0 do 20 punktów, przy czym wyższe wyniki wskazują na poważniejsze uzależnienie seksualne. HBI składa się z 19 pytań, a punktacja mieści się w zakresie od 19 do 95. Całkowity wynik 53 lub wyższy wskazuje na zaburzenie hiperseksualne . Spójności wewnętrzne (współczynnik α Cronbacha) SAST-R i HBI wynoszą odpowiednio 0.91 i 0.96 ( Carnes i in., 2010 ; Reid i in., 2011 ).
Eksperymentalny bodziec i eksperymentalny paradygmat
Przeprowadzono wstępne badanie na 130 mężczyznach z prawidłowymi funkcjami seksualnymi, którzy nie brali udziału w eksperymencie fMRI, w celu wybrania bodźców seksualnych i nieseksualnych do badania fMRI (plik S1). Bodźce wizualne składały się z 20 zdjęć zebranych z Międzynarodowego Systemu Obrazów Afektywnych (6 zdjęć; Lang i in., 2008 ) i stron internetowych (14 zdjęć). Bodźce seksualne składały się ze zdjęć przedstawiających nagie kobiety i aktywność seksualną. Dodatkowo, 20 zdjęć, które nie wywoływały żadnego pożądania seksualnego, wybrano jako bodźce nieseksualne. Zostały one dopasowane do bodźców seksualnych pod względem poziomu przyjemności. Bodźce nieseksualne przedstawiały sceny o wysokim poziomie podniecenia, takie jak sporty wodne, świętowanie zwycięskiego zwycięstwa i jazda na nartach. Te bodźce wybrano w celu zidentyfikowania aktywności mózgu, która była związana wyłącznie z pożądaniem seksualnym, poprzez wykluczenie aktywności wynikającej z uczuć przyjemności i ogólnego podniecenia.
W przypadku paradygmatu eksperymentalnego fMRI, na początku eksperymentu przez 6 sekund podawano krótkie instrukcje dotyczące eksperymentu, po czym losowo prezentowano bodźce seksualne lub nieseksualne przez 5 sekund każdy . Każdy odstęp między bodźcami wynosił 7–13 sekund (średnio 10 sekund), aby pomóc uczestnikowi powrócić do stanu wyjściowego. Aby utrzymać uwagę uczestników na bodźcach, proszono ich o naciśnięcie przycisku reakcji, gdy nieoczekiwany cel był prezentowany przez około 500 ms, łącznie 12 razy w dowolnym odstępie. Całkowity czas potrzebny na przeprowadzenie eksperymentu wyniósł 8 minut i 48 sekund (Rysunek 1 ).
RYSUNEK 1
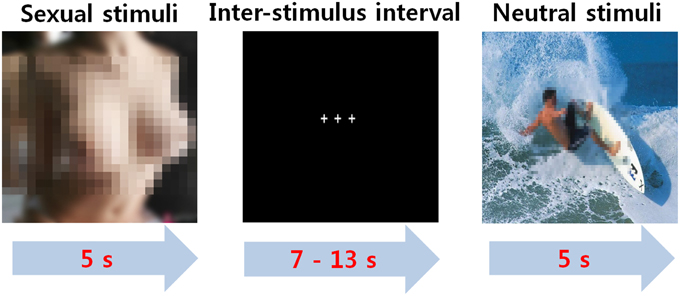
Rysunek 1. Paradigmat związany z wydarzeniami dla pożądania seksualnego.
Po zakończeniu eksperymentu fMRI uczestnicy oglądali te same bodźce, które były prezentowane w eksperymencie fMRI, a następnie musieli odpowiedzieć na trzy poniższe pytania w ramach oceny psychologicznej.
Najpierw poproszono ich o odpowiedź "tak" lub "nie" na pytanie, czy odczuli pożądanie seksualne, gdy wizualizowali każdy bodziec.
Po drugie, musieli ocenić swoje pożądanie seksualne na pięciostopniowej skali Likerta, począwszy od 1 (najmniej intensywny) do 5 (najbardziej intensywny).
Po trzecie, subiektywne oceny uczestników dotyczące wymiarów wartościowości i pobudzenia dla każdego bodźca zostały określone zgodnie z siedmiostopniową skalą Likerta.
Oceny zostały sformułowane w dwóch wymiarach. Wartościowość, która była dodatnia lub ujemna, wahała się od bardzo ujemnego w 1 do bardzo dodatniego w 7, a emocjonalne pobudzenie wahało się od spokoju na 1 do podekscytowania / pobudzenia w 7. Wreszcie, uczestnicy byli zobowiązani do zgłaszania wszelkich innych emocji, których doświadczyli poza pożądaniem seksualnym podczas ich ekspozycji na każdy bodziec.
Akwizycja obrazu
Akwizycję obrazu przeprowadzono za pomocą skanera rezonansu magnetycznego Philips o natężeniu 3.0 T (Philips Healthcare, Best, Holandia). Do akwizycji 35 ciągłych warstw obrazów zależnych od poziomu tlenu we krwi (BOLD) wykorzystano metodę skanowania fMRI z obrazowaniem echoplanarnym w trybie pojedynczego zdjęcia [parametry obrazowania: czas powtórzenia (TR) = 2,000 ms, czas echa (TE) = 28 ms, grubość warstwy = 5 mm bez przerwy, matryca = 64 × 64, pole widzenia (FOV) = 24 × 24 cm, kąt nachylenia = 80° i rozdzielczość w płaszczyźnie = 3.75 mm]. Obrazy anatomiczne ważone T1 uzyskano przy użyciu 3-wymiarowej sekwencji odzyskiwania inwersji z osłabieniem płynem ( TR = 280, TE = 14 ms, kąt obrotu = 60°, pole widzenia = 24 × 24 cm, matryca = 256 × 256 i grubość warstwy = 4 mm).
Analizy statystyczne
Aby zbadać reakcje behawioralne i neuronalne oparte wyłącznie na pożądaniu seksualnym, z analizy danych wyłączono dane obrazowe i psychologiczne dotyczące trzech obrazów wywołujących inne emocje, takie jak wstręt, gniew czy zaskoczenie, niż pobudzenie seksualne. Niezależne testy t dla częstotliwości i intensywności pożądania seksualnego między obiema grupami przeprowadzono z użyciem oprogramowania SPSS 22 (IBM Corporation, Armonk, NY, USA). Częstotliwość pożądania seksualnego została uznana za liczbę bodźców, dla których każdy uczestnik odczuwał pożądanie seksualne spośród 20 bodźców seksualnych, a intensywność pobudzenia seksualnego za średni poziom subiektywnego pożądania seksualnego dla 20 obrazów erotycznych.
Do analizy danych fMRI zastosowano SPM8 (Wellcome Department of Imaging Neuroscience, London, UK). Na etapie przetwarzania wstępnego rejestrację obrazu MRI przeprowadzono w następującej kolejności: korekta czasowa korekcji dla przełożonego akwizycji, korekcja ruchu i normalizacja przestrzenna na standardowym szablonie dostarczonym przez Montreal Neurological Institute (MNI). Następnie znormalizowane obrazy zostały wygładzone za pomocą jądra Gaussa 8-mm.
Po zakończeniu wstępnego przetwarzania, dla każdego uczestnika stworzono macierze projektowe z dwoma stanami (stan seksualny i stan nieseksualny) w celu zidentyfikowania obszarów aktywacji związanych z pożądaniem seksualnym. Indywidualne analizy pierwszego poziomu porównań stanu seksualnego i stanu nieseksualnego zostały wykorzystane do analizy efektów losowych, a dla każdego uczestnika stworzono obrazy uśrednione. Jednopróbkowe testy t dla obrazów uśrednionych zostały wykorzystane do oceny istotnych efektów grupowych w każdej grupie na obrazach kontrastowych utworzonych w analizach indywidualnych. Dwupróbkowe testy t zostały przeprowadzone w celu zidentyfikowania różnic między obiema grupami dla reakcji mózgu w stanie seksualnym w porównaniu do stanu nieseksualnego. Ponadto analizy korelacyjne przeprowadzono tylko w grupie PHB w celu określenia obszarów aktywacji, które korelowały z nasileniem hiperseksualności zgodnie z SAST-R. Ponieważ wariancja wyników kwestionariusza mogła być zbyt niska, aby ujawnić bardziej istotne korelacje w grupie kontrolnej, analizy korelacyjne nie zostały przeprowadzone w grupie kontrolnej. Wartości p mniejsze niż 0.05 (współczynnik fałszywych odkryć, skorygowany, rozmiar klastra ≥ 20) lub 0.001 (nieskorygowany, rozmiar klastra ≥ 20) uznano za istotne dla aktywności mózgu, ponieważ poziomy te są powszechnie akceptowane w badaniach fMRI. Wszystkie współrzędne aktywowanych wokseli przedstawiono jako współrzędne MNI w tabelach 3 i 4.
Procentową zmianę sygnału wyodrębniono z obszarów zainteresowania (ROI) na podstawie wyników analizy międzygrupowej i korelacji [tj. obustronne wzgórze, prawa grzbietowo-boczna kora przedczołowa (DLPFC), lewe jądro ogoniaste, prawy zakręt nadbrzeżny i prawy grzbietowo-przedni zakręt obręczy] za pomocą MarsBaR ( http://www.sourceforge.net/projects/marsbar ). Obszary zainteresowania utworzono, umieszczając 5-milimetrową sferę wokół współrzędnych podanych w Tabelach 3 , 4. Aby zbadać charakterystykę czasową odpowiedzi hemodynamicznych, przebieg czasowy sygnału BOLD został również wyodrębniony z obszarów zainteresowania podczas prezentacji każdego bodźca seksualnego (łącznie 12 s; 5 s i 7 s później) dla wszystkich uczestników . Przebiegi czasowe zostały następnie uśrednione dla wszystkich uczestników w każdej grupie.
W ramach dalszego testu korelacji w celu obliczenia współczynnika korelacji przeanalizowano w grupie PHB związki między wynikami SAST-R i HBI oraz procentowymi zmianami sygnału w obszarach zainteresowania (ROI) na podstawie wyników analizy korelacji (Tabela 4 ) przy użyciu oprogramowania SPSS 22.
Efekty
Wyniki ocen psychologicznych
Spośród zdrowych osób kontrolnych 20 tylko dwie donoszą o innych emocjach poza podnieceniem seksualnym w odpowiedzi na trzy bodźce seksualne. Jeden z uczestników grupy kontrolnej zgłosił, że dwa bodźce seksualne wśród bodźców seksualnych 20 wywoływały odrazę i gniew, podczas gdy drugi uczestnik w grupie kontrolnej ocenił, że jeden obraz seksualny wywołał zaskoczenie. Trzy zdjęcia seksualne, które wywoływały uczucia inne niż podniecenie seksualne, zostały wyłączone z analizy danych.
Niezależny t- test nie wykazał różnic grupowych w zakresie wartościowości i pobudzenia w odpowiedzi na sygnały seksualne [wartościowość: t(43) = 0.14, p> 0.05, Cohena d = 0.042; pobudzenie: t(43) = 0.30,p> 0.05, Cohena d = 0.089]. Dodatkowo, procent bodźców seksualnych wśród zdjęć erotycznych 20, które wywołały pożądanie seksualneWyjaśnił, że grupa PHB odczuwała pożądanie seksualne częściej niż grupa kontrolna podczas ekspozycji na bodziec seksualnyja [t(43) = 3.23, p <0.01, Cohena d = 0.960]. Tintensywność podniecenia seksualnego wykazała, że grupa PHB doświadczyła silniejszego pobudzenia seksualnego niż grupa kontrolna w odpowiedzi na stymulujące seksualnie zdjęcia [t(43) = 14.3, p <0.001, Cohena d = 4.26]. Wyniki ocen psychologicznych przedstawiono w tabeli 2.
TABELA 2
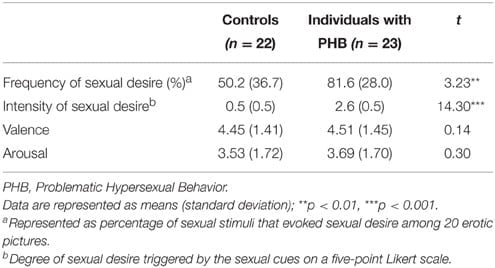
Tabela 2. Wyniki oceny psychologicznej.
Wyniki fMRI
W grupie PHB obserwowano aktywację obustronnie w środkowym/dolnym zakręcie czołowym [pole Brodmanna (BA) 9], klinie/przedklinku (BA 7, 18 i 19), prążkowiu, wzgórzu i zakręcie obręczy (BA 24 i 32) w odpowiedzi na bodźce seksualne w porównaniu z bodźcami nieseksualnymi. W grupie kontrolnej aktywację obserwowano obustronnie w środkowym/dolnym zakręcie czołowym (BA 9), klinie/przedklinku (BA 7, 18 i 19), prążkowiu, wzgórzu i lewym zakręcie obręczy (BA 24) (skorygowany współczynnik fałszywych odkryć, p < 0.05).
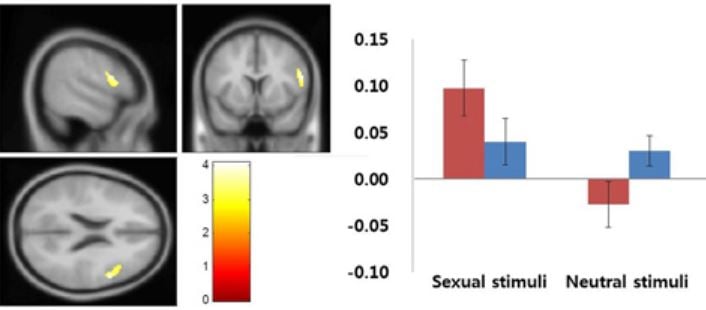
W analizie międzygrupowej, grupa PHB wykazała większą aktywację w prawej grzbietowej przedniej korze obręczy (dACC; BA 24 i 32), obustronnych wzgórzach, lewym jądrze ogoniastym, prawej DLPFC (BA 9, 46) i prawym zakręcie nadbrzeżnym (BA 40) w porównaniu z aktywacją w grupie kontrolnej podczas ekspozycji na bodźce seksualne w porównaniu z bodźcami nieseksualnymi. Żaden obszar mózgu w grupie kontrolnej nie wykazał większej aktywacji niż w grupie PHB . Wszystkie współrzędne aktywowanych wokseli przedstawiono jako współrzędne MNI w tabelach 3 i 4 . Rysunek 2 przedstawia procentowe zmiany sygnału w grupie kontrolnej i PHB w każdym warunku eksperymentalnym (czyli warunkach seksualnych i nieseksualnych) dla wybranych obszarów zainteresowania, a rysunek 3 przedstawia średnie szeregi czasowe dla każdej grupy procentowych zmian sygnału w każdym punkcie czasowym w obszarach zainteresowania podczas prezentacji każdego bodźca seksualnego (łącznie 12 s; 5 i 7 s później) na podstawie wyników analizy między grupami.
TABELA 3
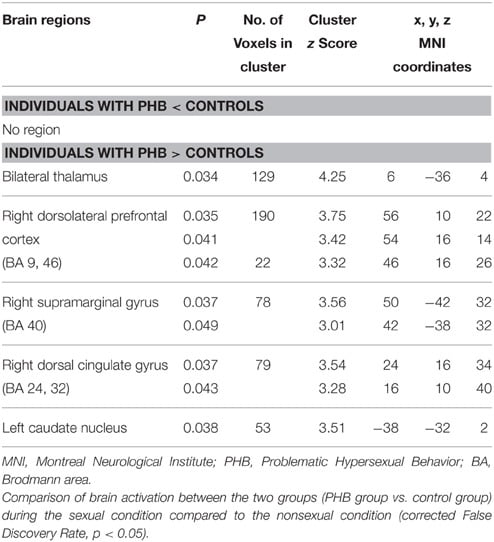
Tabela 3. Obszary mózgu zidentyfikowane w analizie grupowej.
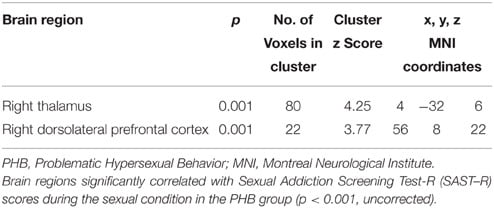
Tabela 4. Obszary mózgu zidentyfikowane w analizie korelacyjnej w grupie PHB podczas ekspozycji na bodźce seksualne.
RYSUNEK 2
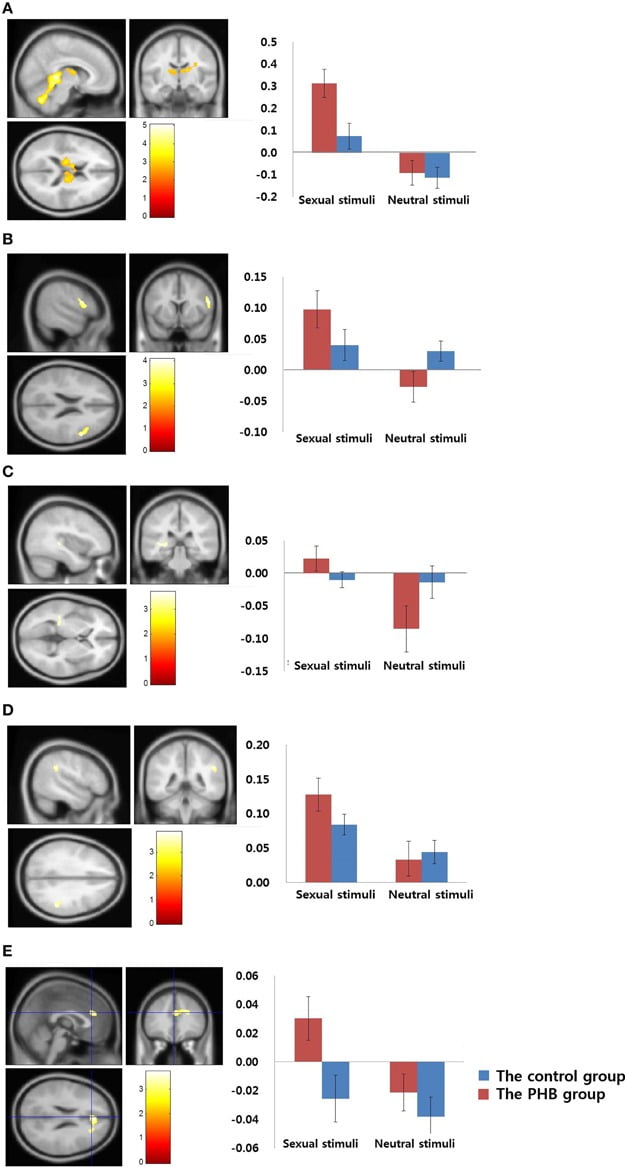
Rysunek 2. Wyniki analizy między grupami. () Dwustronne wzgórze (współrzędna MNI; x = 6, y = -36, z = 4) (B) Prawe grzbietowo-boczne kory przedczołowej (współrzędna MNI;x = 56, y = 10, z = 22) (DO) Lewy jądro ogoniaste (współrzędna MNI; x = -38, y = -32, z = 2)(D) Prawy nadraminowy zakręt (współrzędna MNI; x = 50, y = -42, z = 32) (MI) Prawy tylny zakręt obręczy przedniej (współrzędna MNI; x = 24, y = -16, z = 34). Wyniki porównania aktywacji w bodźcach seksualnych minus bodźce nieseksualne między PHB a grupami kontrolnymi (p <0.05, współczynnik fałszywych odkryć, poprawiony). Grupa kontrolna i grupa PHB są przedstawione odpowiednio na niebiesko i czerwono. Oś Y przedstawia procentową zmianę sygnału, a słupki błędu reprezentują błąd standardowy średniej.
RYSUNEK 3
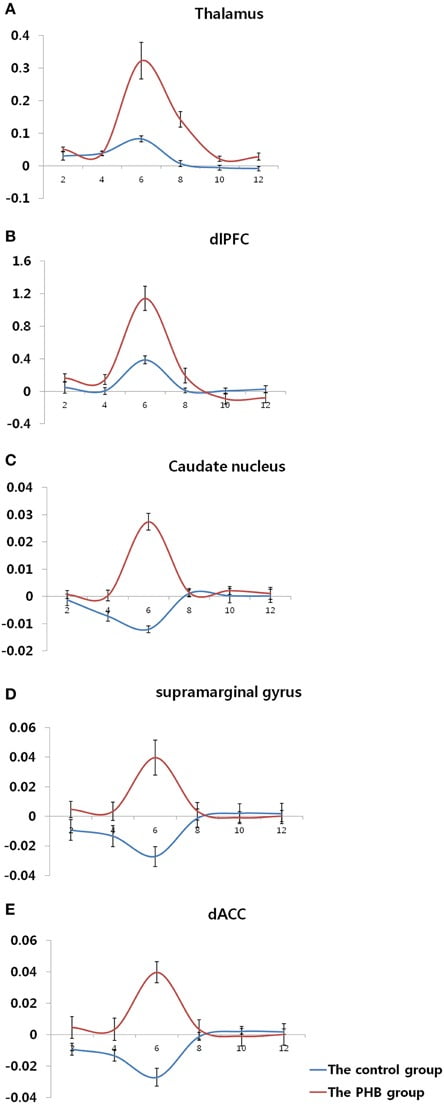
Rysunek 3. Przebieg czasowy odpowiedzi hemodynamicznych w każdym regionie zainteresowania.() Dwustronne wzgórze (współrzędna MNI; x = 6, y = -36, z = 4) (B) Prawe grzbietowo-boczne kory przedczołowej (współrzędna MNI; x = 56, y = 10, z = 22) (DO) Lewy jądro ogoniaste (współrzędna MNI; x = -38, y = -32, z = 2) (D) Prawy nadraminowy zakręt (współrzędna MNI; x = 50, y = -42, z = 32) (MI) Prawy tylny zakręt obręczy przedniej (współrzędna MNI; x = 24, y = -16, z = 34). Oś Y i oś X wyświetlają odpowiednio procentową zmianę sygnału i czas (czasy), a słupki błędu reprezentują błąd standardowy średniej.
Analiza korelacji regionów związanych z oceną SAST-R wykazała, że prawe wzgórze i DLPFC (BA 9) były skorelowane z wynikami SAST-R (p <0.001, nieskorygowane) w grupie PHB podczas ekspozycji na bodźce seksualne, jak pokazano w tabeli 4.wyniki dalszej analizy wykazały, że procentowa zmiana sygnału wyekstrahowanego z prawego wzgórza i DLPFC korelowała znacząco z ciężkością hiperseksualności, jak pokazano na rysunku 4. Procent sygnału zmienia się we właściwym wzgórzu, a prawy DLPFC koreluje dodatnio z wynikami SAST-R w grupie PHB podczas ekspozycji na bodźce seksualne (wzgórze prawidłowe: r = 0.74, n = 23, p <0.01; prawy DLPFC: r = 0.63, n = 23, p <0.01). Ponadto procentowe zmiany sygnału w prawym DLPFC i prawym wzgórzu były dodatnio powiązane z wynikami HBI w grupie PHB (prawe wzgórze: r = 0.65, n = 23, p <0.01; prawy DLPFC: r = 0.53, n = 23, p <0.01), jak pokazano na rysunku 4.
RYSUNEK 4
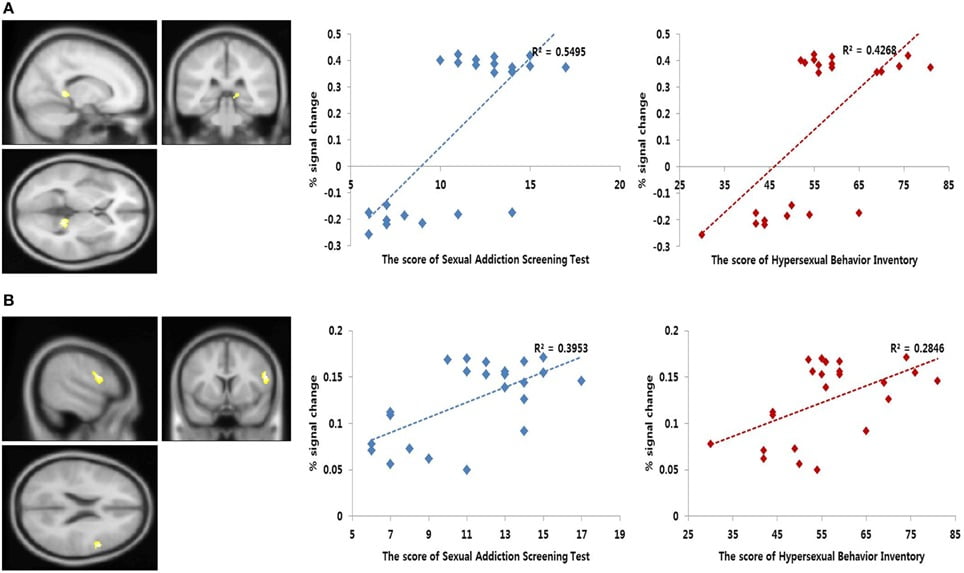
Rysunek 4. Wyniki analizy korelacyjnej . Po lewej, analiza korelacyjna funkcjonalnego rezonansu magnetycznego (fMRI). Obszary wykazujące istotną korelację między aktywnością mózgu podczas pożądania seksualnego a wynikami testu przesiewowego uzależnienia seksualnego SAST-R ( p < 0.001, nieskorygowane). Po prawej, liniowa zależność między procentowymi zmianami sygnału wyodrębnionymi z każdego obszaru a wynikami nasilenia objawów seksualnych [tj. wyniki SAST-R i inwentarza zachowań hiperseksualnych (HBI)]. Oś x przedstawia wyniki nasilenia objawów seksualnych, a oś y przedstawia procentową zmianę sygnału. ( A) Wzgórze obustronne (współrzędna MNI; x = 4, y = −32, z = 6) (B) Prawa grzbietowo-boczna kora przedczołowa (współrzędna MNI; x = 56, y = 8, z = 22).
Dyskusja
W niniejszym badaniu sprawdzono, czy istnieje różnica w poziomach pożądania seksualnego między osobami z PHB i zdrowymi osobami kontrolnymi, a jeśli tak, to czy ta różnica była związana ze zmianami funkcjonalnymi w neuronalnych substratach pożądania seksualnego u tych osób. Zgodnie z przewidywaniami, grupa PHB wykazała istotnie podwyższone poziomy pożądania seksualnego i zmienioną aktywację w PFC i obszarach podkorowych w porównaniu z osobami kontrolnymi. Wyniki te sugerują, że zmiany funkcjonalne w obwodach neuronalnych, które pośredniczą w wywołanym bodźcem pragnieniu zachowań seksualnych, były podobne do tych w odpowiedzi na prezentację bodźca u osób uzależnionych od substancji lub uzależnień behawioralnych ( Garavan i in., 2000 ; Tapert i in., 2003 ; Crockford i in., 2005 ; Franklin i in., 2007 ; Ko i in., 2009 ; McClernon i in., 2009 ). Voon i in. (2014) opisali nieprawidłowe pożądanie i zmiany funkcjonalne w obszarach związanych ze wzmożonym pożądaniem u osób z kompulsywnymi zachowaniami seksualnymi. Powtórzyliśmy i rozszerzyliśmy te wyniki, badając serie czasowe aktywacji w ciągu 12 sekund w obszarach związanych z pożądaniem seksualnym.
Zgodnie z hipotezą, analiza wyników ocen psychologicznych wykazała, że grupa PHB wykazywała częstsze pożądanie seksualne niż grupa kontrolna podczas ekspozycji na bodźce seksualne, co sugerowało, że ta grupa miała niższy próg pożądania seksualnego . Gdy pożądanie seksualne zostało wywołane, grupa PHB wykazała wyższą intensywność pożądania seksualnego niż grupa kontrolna. Wynik ten był spójny z wcześniejszymi wynikami dotyczącymi osób z grupy PHB ( Laier i in., 2013 ; Laier i Brand, 2014 ; Voon i in., 2014 ), szczególnie wykazującymi, że pożądanie pornografii może odgrywać kluczową rolę w uzależnieniu od cyberseksu.
Wyniki dotyczące reakcji mózgu na bodźce seksualne dobrze pokrywają się z wcześniejszymi wynikami neuroobrazowania, które wskazywały, że aktywność obserwuje się w obszarach mózgu zaangażowanych w pożądanie seksualne lub motywację/oczekiwanie, a także upodobanie seksualne lub pobudzenie/konsumpcję, gdy wszyscy uczestnicy są narażeni na bodźce seksualne ( Georgiadis i Kringelbach, 2012 ). Wyniki porównań grupowych obrazowania mózgu ujawniły zmienioną aktywację w prawej DLPFC (BA 9) i obszarach podkorowych, w tym prawej dACC (BA 24 i 32), lewym jądrze ogoniastym, prawym zakręcie nadbrzeżnym (BA 40) i prawym wzgórzu, a te zmiany mogą być związane z cechami behawioralnymi grupy PHB. Oprócz aktywacji mózgu, zbadaliśmy szereg czasowy odpowiedzi hemodynamicznych w tych obszarach podczas i po pobudzeniu pożądania seksualnego w tych obszarach.
Spośród tych regionów zakłada się, że lewe jądro ogoniaste i prawe ACC (BA 24 i 32) oraz prawa DLPFC są powiązane z motywacyjnym komponentem pożądania seksualnego. Zaangażowanie jądra ogoniastego w przetwarzanie motywacji i nagrody może wyjaśniać jego reakcję na bodźce seksualne ( Delgado, 2007 ). Prążkowie grzbietowe jest aktywowane podczas oczekiwania na nagrodę ( Delgado, 2007 ), co prawdopodobnie odzwierciedla pożądanie związane z takim oczekiwaniem. W badaniu odpowiedzi neuronalnych związanych z konsumpcją pornografii, częsta aktywacja w wyniku ekspozycji na pornografię może skutkować osłabieniem i obniżeniem regulacji prążkowia, w tym jądra ogoniastego, u zdrowych osób kontrolnych ( Kühn i Gallinat, 2014 ). Jednak w obecnym badaniu zaobserwowano większą aktywację jądra ogoniastego w grupie PHB, mimo że grupa PHB oglądała pornografię częściej . Różnice między wynikami niniejszego badania a wynikami Kühna i Gallinata (2014) mogą wynikać z różnic w uczestnikach. W przeciwieństwie do poprzedniego badania, w którym udział wzięli zdrowi dorośli mężczyźni, nasze badanie przeprowadzono na osobach z PHB. Gromadzące się dowody sugerują, że jądro ogoniaste odgrywa ważną rolę w uczeniu się nawyku reakcji na bodziec i utrzymywaniu zachowań uzależniających ( Vanderschuren i Everitt, 2005 ). Aktywacja jądra ogoniastego w tym badaniu może sugerować, że reaktywność na bodźce seksualne kształtuje się po wielokrotnej ekspozycji na doświadczenia seksualne.
Wiadomo, że dACC jest powiązany z motywacyjnymi mechanizmami pożądania seksualnego (Redouté i wsp., 2000; Arnow i wsp., 2002; Hamann i wsp., 2004; Ferretti i wsp., 2005; Ponseti i wsp., 2006; Paul i wsp., 2008). Nasze odkrycia dotyczące aktywacji dACC sugerują, że odgrywa ona rolę w pożądaniu seksualnym, a wyniki te były podobne do wyników badania dotyczącego aktywności nerwowej związanej z pożądaniem u osób z kompulsywnymi zachowaniami seksualnymi (Voon i wsp., 2014). Ponadto wiadomo, że dACC odgrywa ważną rolę w początkowym przetwarzaniu zachowań ukierunkowanych na cel, angażując się w monitorowanie konfliktów między pragnieniem ekspresji behawioralnej a powstrzymywaniem tej potrzeby (Devinsky i wsp., 1995; Arnow i wsp., 2002;Karama i wsp., 2002; Moulier i wsp., 2006; Safron i wsp., 2007). Neuroanatomically, dACC projektuje do DLPFC i płata ciemieniowego (Devinsky i wsp., 1995; Pizzagalli i wsp., 2001). W tym badaniu aktywacja w dACC w grupie PHB może odzwierciedlać wewnętrzny konflikt między pragnieniem wyrażania impulsów seksualnych jako działań i chęci stłumienia impulsów z powodu czynników sytuacyjnych podczas prezentacji bodźców seksualnych.
Aktywacja zakrętu nadbrzeżnego jest związana ze zwiększoną uwagą na cele, które są postrzegane jako wskazówki seksualne ( Redouté i in., 2000 ; Stoléru i in., 2012 ). Poprzednie badania sugerowały, że zwiększona uwaga na bodźce seksualne odgrywa ważną rolę w utrzymaniu pożądania seksualnego ( Barlow, 1986 ; Janssen i Everaerd, 1993 ) i jest związana z poszukiwaniem doznań seksualnych ( Kagerer i in., 2014 ). W obecnym badaniu aktywacja nadbrzeżna może odzwierciedlać większą uwagę, jaką osoby z PHB poświęcały bodźcom seksualnym, co może skutkować wyższym poziomem pożądania seksualnego w porównaniu z grupą kontrolną.
Wśród regionów, które zostały znacząco aktywowane w wynikach między grupami, DLPFC i wzgórze bezpośrednio korelowały z ciężkością uzależnienia seksualnego u osób z PHB. Zaobserwowaliśmy większą aktywację wzgórza, co było zgodne z wcześniejszymi wynikami badań nad pobudzeniem seksualnym ( Redouté i in., 2000 ; Moulier i in., 2006 ). Zgodnie z wcześniejszymi badaniami nad pożądaniem seksualnym, aktywacja wzgórza jest związana z odpowiedziami fizjologicznymi (tj. gotowością do aktywności seksualnej), które są indukowane przez pożądanie seksualne i jest dodatnio skorelowana z erekcją prącia ( MacLean i Ploog, 1962 ; Redouté i in., 2000 ; Moulier i in., 2006 ). Co ciekawe, zaobserwowaliśmy również wyższy i szerszy wzorzec hemodynamiczny we wzgórzu w porównaniu z grupą kontrolną. Ta wyższa i szersza odpowiedź hemodynamiczna może wskazywać, że pobudzenie seksualne było silniejsze i dłuższe u osób z PHB.
Podobnie jak w wynikach badań nad aktywnością neuronalną u osób uzależnionych podczas pożądania wywołanego bodźcem, w grupie PHB zaobserwowaliśmy zaburzenia funkcji kory przedczołowej (PFC). Kora przedczołowa ( PFC) odgrywa kluczową rolę w planowaniu przyszłości i pamięci roboczej ( Bonson i in., 2002 ). Neuroanatomicznie kora przedczołowa (PFC) jest połączona z różnymi obszarami, w tym z dolnym korą przedczołową (dACC), jądrem ogoniastym i płatem ciemieniowym ( Devinsky i in., 1995 ; Pizzagalli i in., 2001 ; Goldman-Rakic i Leung, 2002 ). Poprzednie badania nad uzależnieniem wykazały, że dysfunkcja tej sieci, w tym PFC, jest związana z regulacją przez PFC regionów nagrody limbicznej i jej udziałem w funkcjach wykonawczych wyższego rzędu, w tym samokontroli, atrybucji saliencji i świadomości ( Goldman-Rakic i Leung, 2002 ; Feil i in., 2010 ; Goldstein i Volkow, 2011 ; Kühn i Gallinat, 2014 ). W szczególności badania te zidentyfikowały zaburzoną funkcję DLPFC jako upośledzenie atrybucji saliencji, co skutkuje objawami, takimi jak nienormalnie zwiększona wrażliwość na sygnał uzależniający, taki jak substancja i zachowania uzależnione oraz zmniejszone zainteresowanie normalnymi bodźcami nagradzającymi ( Goldman-Rakic i Leung, 2002 ; Goldstein i Volkow, 2011 ). W niniejszym badaniu obserwacja większej aktywacji DLPFC w grupie PHB w porównaniu z grupą kontrolną może odzwierciedlać nadmierne przypisywanie saliencji sygnałom seksualnym.
Podsumowując, grupa PHB wykazała większe pożądanie seksualne, które wiązało się ze zmienioną aktywnością mózgu. Wyniki te wskazują, że grupa PHB może poświęcać nadmierną uwagę bodźcom seksualnym i że może mieć automatyczną odpowiedź, ponieważ warunkowa odpowiedź na bodźce seksualne nie mogła być prawidłowo pośredniczona. Ograniczenia niniejszego badania były następujące. Po pierwsze, rasa badanych była azjatycka. Po drugie, w badaniu tym uczestniczyli tylko heteroseksualni mężczyźni, a przyszłe badania z udziałem kobiet i homoseksualnych mężczyzn powinny być pomocne w lepszym zrozumieniu PHB. Osoby z PHB i współwystępującymi zaburzeniami psychicznymi nie zostały włączone do niniejszego badania, co zapewnia badanie dysfunkcji neuronalnej wyłącznie na podstawie PHB. Jednak według badania Weissa (2004) 28% mężczyzn z PHB cierpi na duże zaburzenie depresyjne. Łączne te czynniki ograniczają możliwość uogólnienia wyników badania na szerszą populację uniwersalną. Wreszcie, obie grupy mogły różnić się pod względem samoświadomości i/lub wrażliwości emocjonalnej ze względu na leczenie uczestników z PHB. Staraliśmy się zmniejszyć różnice między grupą kontrolną a grupą PHB, dopasowując istotne zmienne demograficzne, takie jak wiek, poziom wykształcenia i preferencja ręki prawej, dla celów porównawczych, a także stosując ścisłe kryteria wykluczenia, takie jak obecność zaburzeń psychicznych i aktualne stosowanie leków psychotropowych, w obu grupach. Następnie planujemy zbadać, jak zmienne związane z okresem lub rodzajem leczenia wpływają na reakcje emocjonalne, w tym reakcje na bodźce seksualne, u osób z PHB.
Pomimo tych ograniczeń wyniki tego badania znacznie przyczyniają się do piśmiennictwa i mają znaczący wpływ na przyszłe badania. Zidentyfikowaliśmy określone obszary mózgu, które były bezpośrednio związane z pożądaniem seksualnym i czasowe zmiany aktywności tych regionów wśród osób z PHB. Podobnie jak badania obrazowania mózgu na uzależnienie od substancji i zachowań, PHB powiązano ze zmianami funkcjonalnymi w PFC i obszarach podkorowych, nawet bez neurotoksyczności leków. Nasze wyniki są zatem przydatne do scharakteryzowania zachowań i związanych z nimi mechanizmów nerwowych osób z PHB, i idą o krok poza opisy cech, jak we wcześniejszych badaniach.
Finansowanie
Prace te były wspierane przez Korea Basic Science Institute (nr E35600) i fundusz badawczy 2014 Chungnam National University.
Oświadczenie o konflikcie interesów
Autorzy oświadczają, że badanie zostało przeprowadzone przy braku jakichkolwiek powiązań handlowych lub finansowych, które mogłyby być interpretowane jako potencjalny konflikt interesów.
Podziękowanie
Autorzy pragną podziękować Korea Basic Science Institute za umożliwienie przeprowadzenia tego badania w Katedrze Centrum Imaging Imaging Center przy użyciu skanera MRI 3T (Phillips).
Materiał uzupełniający
Materiały uzupełniające do tego artykułu można znaleźć w Internecie pod adresem: http://journal.frontiersin.org/article/10.3389/fnbeh.2015.00321
Referencje
Amerykańskie Towarzystwo Psychiatryczne (2013). Podręcznik diagnostyczny i statystyczny zaburzeń psychicznych, wyd . 5. Arlington, Wirginia: American Psychiatric Publishing.
Arnow, BA, Desmond, JE, Banner, LL, Glover, GH, Solomon, A., Polan, ML i wsp. (2002). Aktywacja mózgu i pobudzenie seksualne u zdrowych mężczyzn heteroseksualnych. Brain 125, 1014–1023. doi: 10.1093/brain/awf108
Barlow, DH (1986). Przyczyny dysfunkcji seksualnych: rola lęku i zaburzeń poznawczych. J. Consult. Clin. Psychol . 54, 140–148. doi: 10.1037/0022-006X.54.2.140
Beck, AT, Steer, RA i Brown, GK (1996). Inwentarz depresji Becka II . San Antonio, TX: Psychological Corporation.
Birn, RM, Cox, RW i Bandettini, PA (2002). Detekcja a estymacja w fMRI związanym ze zdarzeniami: wybór optymalnego momentu stymulacji. Neuroimage 15, 252–264. doi: 10.1006/nimg.2001.0964
Black, DW (2000). Epidemiologia i fenomenologia kompulsywnych zachowań seksualnych. CNS Spectr. 5, 26–72. doi: 10.1017/S1092852900012645
Bonson, KR, Grant, SJ, Contoreggi, CS, Links, JM, Metcalfe, J., Weyl, HL i in. (2002). Układy neuronalne i głód kokainowy wywołany bodźcem. Neuropsychopharmacology 26, s. 376–386. doi: 10.1016/S0893-133X(01)00371-2
Bühler, M., Vollstädt-Klein, S., Klemen, J. i Smolka, MN (2008). Czy projekt prezentacji bodźców erotycznych wpływa na wzorce aktywacji mózgu? Projekty fMRI powiązane ze zdarzeniami a projekty z zablokowanym obrazowaniem. Behav. Brain Funct. 4:30. doi: 10.1186/1744-9081-4-30
Buss, AH i Perry, M. (1992). Kwestionariusz agresji. J. Pers. Soc. Psychol. 63, 452–459. doi: 10.1037/0022-3514.63.3.452
Carnes, P. (2013). Wbrew miłości: pomoc osobom uzależnionym od seksu . Center City, MN: Hazelden Publishing.
Carnes, P., Green, B. i Carnes, S. (2010). To samo, a jednak inaczej: ponowne ukierunkowanie testu przesiewowego uzależnienia od seksu (SAST) na orientację i płeć. Sex. Addict. Compuls. 17, 7–30. doi: 10.1080/10720161003604087
Carnes, PJ (2001). Out of the Shadows: Understanding Sexual Addiction . Center City, MN: Hazelden Publishing.
Coleman, E. (1992). Czy Twój pacjent cierpi na kompulsywne zachowania seksualne? Psychiatr. Ann. 22, 320–325. doi: 10.3928/0048-5713-19920601-09
Crockford, DN, Goodyear, B., Edwards, J., Quickfall, J. i el-Guebaly, N. (2005). Aktywność mózgu wywołana bodźcami u patologicznych hazardzistów. Biol. Psychiatry 58, 787–795. doi: 10.1016/j.biopsych.2005.04.037
Delgado, MR (2007). Reakcje związane z nagrodą w prążkowiu człowieka. Ann. NY Acad. Sci. 1104, 70–88. doi: 10.1196/annals.1390.002
Devinsky, O., Morrell, MJ i Vogt, BA (1995). Udział przedniej kory obręczy w zachowaniu. Brain 118, 279–306. doi: 10.1093/brain/118.1.279
Feil, J., Sheppard, D., Fitzgerald, PB, Yücel, M., Lubman, DI i Bradshaw, JL (2010). Uzależnienie, kompulsywne poszukiwanie narkotyków i rola mechanizmów czołowo-prążkowiowych w regulacji kontroli hamującej. Neurosci. Biobehav. Rev. 35, 248–275. doi: 10.1016/j.neubiorev.2010.03.001
Ferretti, A., Caulo, M., Del Gratta, C., Di Matteo, R., Merla, A., Montorsi, F. i in. (2005). Dynamika podniecenia seksualnego u mężczyzn: odrębne elementy aktywacji mózgu ujawnione za pomocą fMRI. Neuroobraz 26, 1086–1096. doi: 10.1016/j.neuroimage.2005.03.025
Franklin, TR, Wang, Z., Wang, J., Sciortino, N., Harper, D., Li, Y. i in. (2007). Aktywacja układu limbicznego w odpowiedzi na bodźce związane z paleniem papierosów niezależnie od odstawienia nikotyny: badanie perfuzji fMRI. Neuropsychopharmacology 32, 2301–2309. doi: 10.1038/sj.npp.1301371
Garavan, H., Pankiewicz, J., Bloom, A., Cho, JK, Sperry, L., Ross, TJ i in. (2000). Głód kokainowy wywołany bodźcem: neuroanatomiczna specyfika użytkowników narkotyków i bodźców narkotykowych. Am. J. Psychiatry 157, 1789–1798. doi: 10.1176/appi.ajp.157.11.1789
Georgiadis, JR i Kringelbach, ML (2012). Cykl reakcji seksualnych u człowieka: dowody z obrazowania mózgu łączące seks z innymi przyjemnościami. Prog. Neurobiol. 98, 49–81. doi: 10.1016/j.pneurobio.2012.05.004
Goldman-Rakic, PS i Leung, HC (2002). „Architektura funkcjonalna grzbietowo-bocznej kory przedczołowej u małp i ludzi”, w: Principles of Frontal Lobe Function , red. D.T. Stuss i R.T. Knight (Nowy Jork, NY: Oxford University Press), 85–95.
Goldstein, RZ i Volkow, ND (2011). Dysfunkcja kory przedczołowej w uzależnieniu: wyniki neuroobrazowania i implikacje kliniczne. Nat. Rev. Neurosci. 12, 652–669. doi: 10.1038/nrn3119
Goodman, A. (1993). Diagnoza i leczenie uzależnienia od seksu. J. Sex Marital Ther. 19, 225–251. doi: 10.1080/00926239308404908
Goodman, A. (2001). Co kryje się w nazwie? Terminologia określająca zespół ukierunkowanych zachowań seksualnych. Uzależniony od seksu. Kompuls. 8, 191–213. doi: 10.1080/107201601753459919
Hamann, S., Herman, RA, Nolan, CL i Wallen, K. (2004). Mężczyźni i kobiety różnią się reakcją ciała migdałowatego na wzrokowe bodźce seksualne. Nat. Neurosci . 7, 411–416. doi: 10.1038/nn1208
Janssen, E. i Everaerd, W. (1993). Determinanty męskiego pobudzenia seksualnego. Ann. Rev. Sex Res. 4, 211–245. doi: 10.1080/10532528.1993.10559888
Kafka, MP (2010). Zaburzenie hiperseksualne: proponowana diagnoza dla DSM-V. Arch. Sex. Behav. 39, 377–400. doi: 10.1007/s10508-009-9574-7
Kagerer, S., Wehrum, S., Klucken, T., Walter, B., Vaitl, D. i Stark, R. (2014). Seks przyciąga: badanie indywidualnych różnic w tendencyjności uwagi wobec bodźców seksualnych. PLoS ONE 9:e107795. doi: 10.1371/journal.pone.0107795
Karama, S., Lecours, AR, Leroux, JM, Bourgouin, P., Beaudoin, G., Joubert, S. i in. (2002). Obszary aktywacji mózgu u mężczyzn i kobiet podczas oglądania fragmentów filmów erotycznych. Hum. Brain Mapp , 16, 1–13. doi: 10.1002/hbm.10014
Kim, M. i Kwak, JB (2011). Uzależnienie młodzieży od cyberseksu w erze mediów cyfrowych. J. Humanit. 29, 283–326.
Ko, CH, Liu, GC, Hsiao, S., Yen, JY, Yang, MJ, Lin, WC i in. (2009). Aktywność mózgu związana z chęcią grania w gry online. J. Psychiatr. Res. 43, 739–747. doi: 10.1016/j.jpsychires.2008.09.012
Kor, A., Fogel, Y., Reid, RC i Potenza, MN (2013). Czy zaburzenie hiperseksualne należy klasyfikować jako uzależnienie? Seks. Uzależniony. Kompuls. 20, 27–47. doi: 10.1080/10720162.2013.768132
Kühn, S. i Gallinat, J. (2014). Struktura mózgu i łączność funkcjonalna związana z konsumpcją pornografii: mózg pod wpływem pornografii. JAMA Psychiatry 71, 827–834. doi: 10.1001/jamapsychiatry.2014.93
Kuzma, JM i Black, DW (2008). Epidemiologia, rozpowszechnienie i historia naturalna kompulsywnych zachowań seksualnych. Psychiatr. Clin. North Am. 31, 603–611. doi: 10.1016/j.psc.2008.06.005
Laier, C. i Brand, M. (2014). Dowody empiryczne i rozważania teoretyczne dotyczące czynników wpływających na uzależnienie od cyberseksu z perspektywy poznawczo-behawioralnej. Sex. Addict. Compuls. 21, 305–321. doi: 10.1080/10720162.2014.970722
Laier, C., Pawlikowski, M., Pekal, J., Schulte, FP i Brand, M. (2013). Uzależnienie od cyberseksu: odczuwane podniecenie seksualne podczas oglądania pornografii, a nie w realnym życiu, stanowi różnicę. J. Behav. Addict. 2, 100–107. doi: 10.1556/JBA.2.2013.002
Lang, PJ, Bradley, MM i Cuthbert, BN (2008). Międzynarodowy System Obrazów Afektywnych (IAPS): Ocena Afektywna Obrazów i Instrukcja Obsługi . Raport Techniczny A-8. Gainesville, FL: Uniwersytet Florydy.
MacLean, PD i Ploog, DW (1962). Mózgowa reprezentacja erekcji prącia. J. Neurophysiol. 25, 29–55.
McClernon, FJ, Kozink, RV, Lutz, AM i Rose, JE (2009). 24-godzinna abstynencja od palenia zwiększa potencjał aktywacji fMRI-BOLD w odpowiedzi na sygnały palenia w korze mózgowej i prążkowiu grzbietowym. Psychopharmacology 204, s. 25–35. doi: 10.1007/s00213-008-1436-9
Moulier, V., Mouras, H., Pélégrini-Issac, M., Glutron, D., Rouxel, R., Grandjean, B. i in. (2006). Neuroanatomiczne korelaty erekcji prącia wywołane bodźcami fotograficznymi u mężczyzn. Neuroobraz 33, 689–699. doi: 10.1016/j.neuroimage.2006.06.037
Patton, JH, Stanford, MS i Barratt, ES (1995). Struktura czynnikowa Skali Impulsywności Barratta. J. Clin. Psychol. 51, 768–774.
Paul, T., Schiffer, B., Zwarg, T., Krüger, TH, Karama, S., Schedlowski, M. i in. (2008). Reakcja mózgu na wizualne bodźce seksualne u mężczyzn heteroseksualnych i homoseksualnych. Hum. Brain Mapp. 29, 726–735. doi: 10.1002/hbm.20435
Pizzagalli, D., Pascual-Marqui, RD, Nitschke, JB, Oakes, TR, Larson, CL, Abercrombie, HC i wsp. (2001). Aktywność przedniego zakrętu obręczy jako predyktor stopnia odpowiedzi na leczenie w ciężkiej depresji: dowody z analizy tomografii elektrycznej mózgu. Am. J. Psychiatry 158, 405–415. doi: 10.1176/appi.ajp.158.3.405
Ponseti, J., Bosinski, HA, Wolff, S., Peller, M., Jansen, O., Mehdorn, HM i in. (2006). Funkcjonalny endofenotyp orientacji seksualnej u ludzi. Neuroimage 33, 825–833. doi: 10.1016/j.neuroimage.2006.08.002
Redouté, J., Stoléru, S., Grégoire, MC, Costes, N., Cinotti, L., Lavenne, F. i in. (2000). Przetwarzanie mózgu wizualnych bodźców seksualnych u mężczyzn. Szum. Mapa mózgu. 11, 162–177. doi: 10.1002/1097-0193(200011)11:3<162::AID-HBM30>3.0.CO;2-A
Reid, RC, Garos, S. i Carpenter, BN (2011). Rzetelność, trafność i rozwój psychometryczny Inwentarza Zachowań Hiperseksualnych w grupie mężczyzn leczonych ambulatoryjnie. Sex. Addict. Compuls. 18, 30–51. doi: 10.1080/10720162.2011.555709
Safron, A., Barch, B., Bailey, JM, Gitelman, DR, Parrish, TB i Reber, PJ (2007). Neuronalne korelaty pobudzenia seksualnego u mężczyzn homoseksualnych i heteroseksualnych. Behav. Neurosci. 121, 237–248. doi: 10.1037/0735-7044.121.2.237
Schafer, A., Schienle, A. i Vaitl, D. (2005). Rodzaj i struktura bodźca wpływają na reakcje hemodynamiczne na wizualne bodźce wywołujące wstręt i strach. Int. J. Psychophysiol. 57, 53–59. doi: 10.1016/j.ijpsycho.2005.01.011
Schneider, JP i Schneider, B. (1991). Seks, kłamstwa i przebaczenie: pary opowiadające o leczeniu uzależnienia od seksu. Center City, MN: Hazeldon Publishing.
Seegers, JA (2003). Występowanie objawów uzależnienia od seksu na terenie kampusu uniwersyteckiego. Sex. Addict. Compuls. 10, 247–258. doi: 10.1080/713775413
Stoléru, S., Fonteille, V., Cornélis, C., Joyal, C. i Moulier, V. (2012). Badania neuroobrazowania czynnościowego podniecenia seksualnego i orgazmu u zdrowych mężczyzn i kobiet: przegląd i metaanaliza. Neurosci. Biobehav. Rev. 36, 1481–1509. doi: 10.1016/j.neubiorev.2012.03.006
Tapert, SF, Cheung, EH, Brown, GG, Frank, LR, Paulus, MP, Schweinsburg, AD i wsp. (2003). Reakcja neuronalna na bodźce alkoholowe u nastolatków z zaburzeniami związanymi z używaniem alkoholu. Arch. Gen. Psychiatry 60, 727–735. doi: 10.1001/archpsyc.60.7.727
Vanderschuren, LJ i Everitt, BJ (2005). Mechanizmy behawioralne i neuronalne kompulsywnego poszukiwania narkotyków. Eur. J. Pharmacol. 526, 77–88. doi: 10.1016/j.ejphar.2005.09.037
Voon, V., Mole, TB, Banca, P., Porter, L., Morris, L., Mitchell, S. i in. (2014). Neuronalne korelaty reaktywności na bodźce seksualne u osób z kompulsywnymi zachowaniami seksualnymi i bez nich. PLoS ONE 9:e102419. doi: 10.1371/journal.pone.0102419
Weiss, D. (2004). Częstość występowania depresji u mężczyzn uzależnionych od seksu w Stanach Zjednoczonych. Seks. Uzależniony. Kompulsywność 11, 57–69. doi: 10.1080/10720160490458247
Zarahn, E., Aguirre, G. i D'Esposito, M. (1997). Projekt eksperymentalny oparty na próbach dla fMRI. Neuroimage 6, 122–138. doi: 10.1006/nimg.1997.0279
Słowa kluczowe: problematyczne zachowania hiperseksualne, pożądanie seksualne, obrazowanie funkcjonalnego rezonansu magnetycznego, grzbietowo-boczna kora przedczołowa, odpowiedź hemodynamiczna
Cytowanie: Seok JW i Sohn JH (2015) Neuronalne podłoża pożądania seksualnego u osób z problematycznymi zachowaniami hiperseksualnymi. Front. Behav. Neurosci . 9:321. doi: 10.3389/fnbeh.2015.00321
Otrzymano: 18 czerwca 2015 r .; Przyjęto: 10 listopada 2015 r .;
Opublikowano: 30 listopada 2015 r.
Edytowany przez:
Morten L. Kringelbach , Uniwersytet Oksfordzki, Wielka Brytania i Uniwersytet w Aarhus, Dania, Wielka Brytania
Zrecenzowany przez:
Matthias Brand, Uniwersytet Duisburg-Essen, Niemcy
Janniko Georgiadis, Uniwersyteckie Centrum Medyczne Groningen, Holandia
Prawa autorskie © 2015 Seok i Sohn. Niniejszy artykuł jest dostępny w otwartym dostępie i rozpowszechniany na warunkach licencji Creative Commons Attribution (CC BY) . Wykorzystanie, dystrybucja lub reprodukcja na innych forach jest dozwolona pod warunkiem wskazania autorów lub licencjodawcy oraz cytowania oryginalnej publikacji w tym czasopiśmie, zgodnie z przyjętą praktyką akademicką. Wykorzystanie, dystrybucja lub reprodukcja niezgodne z niniejszymi warunkami są niedozwolone.
*Korespondencja: Jin-Hun Sohn, [email protected]