Neurosci Biobehav Rev. 2011 ian;35(3):939-55. doi: 10.1016/j.neubiorev.2010.10.014. Publicat în format electronic 2 noiembrie 2010.
- 1Bernard B. Brodie, Departamentul de Neuroștiințe, Universitatea din Cagliari, Cittadella Universitaria, 09042 Monserrato, CA, Italia. [e-mail protejat]
ABSTRACT
Oxitocina este un inductor puternic al erecției penisului când este injectat în sistemul nervos central. La șobolanii masculi, zona cea mai sensibilă a creierului pentru efectul pro-erectil al oxitocinei este nucleul paraventricular al hipotalamusului. Acest nucleu și regiunile înconjurătoare conțin corpurile celulare ale tuturor neuronilor oxitocinergici care se proiectează în zonele extra-hipotalamice ale creierului și în măduva spinării. Această revizuire arată că oxitocina induce erecția penisului și atunci când este injectată în unele din aceste zone (de exemplu, zona tegmentală ventrală, subcapulul ventral al hipocampului, nucleul cortical de tip posterior al amigdalei și măduva spinării toraco-lombare). Programele de microinjecție combinate cu studii de microdializă intra-cerebrală și studii de imunofluorescență dublă sugerează că oxitocina din aceste zone activează neuronii mesolimbici dopaminergici direct sau indirect (în principal prin acid glutamic). Dopamina eliberată în nucleul accumbens activează la rândul său căile neuronale care duc la activarea neuronilor dopaminergici incerto-hipotalamici în nucleul paraventricular. Acest lucru activează nu numai neuronii oxitocinergici care se proiectează în măduva spinării și medierea erecției penisului, ci și cei care se proiectează în zonele extra-hipotalamice de mai sus, modulând direct sau indirect (prin acid glutamic) activitatea neuronilor mezolimbici dopaminergici care controlează motivația și recompensa. Împreună, aceste căi neuronale pot constitui un circuit ipotetic complex, care joacă un rol nu numai în faza de consummare a activității sexuale (funcția erectilă și copulare), ci și în aspectele motivaționale și pline de satisfacție ale fazei anticipative a comportamentului sexual.
1.Introduction
Erecția peniană este un răspuns sexual masculin care joacă un rol cheie în reproducerea mamiferelor, inclusiv a omului, și care poate fi observat și în contexte diferite de cele strict legate de reproducere. În funcție de contextul în care are loc erecția peniană, diferite mecanisme neuronale și/sau umorale centrale și periferice participă la reglarea acesteia (vezi Meisel și Sachs, 1994; Argiolas și Melis, 1995, 2004, 2005; Sachs, 2000, 2007; McKenna, 2000; Giuliano și Rampin, 2000, 2004; Andersson, 2001; Melis și Argiolas, 1995a, 2003; Hull și colab., 2002). Printre neurotransmițătorii și neuropeptidele centrale care controlează erecția peniană, cei mai cunoscuți sunt dopamina, serotonina, aminoacizii excitatori, oxidul nitric, adrenocorticotropina, oxitocina și peptidele opioide . Acestea pot facilita sau inhiba erecția peniană acționând în mai multe zone ale creierului, de exemplu, zona preoptică medială, nucleul paraventricular al hipotalamusului, zona tegmentală ventrală, hipocampus, amigdală, nucleul patului striei terminale, nucleul accumbens, rahideala și măduva spinării (Tabelul 1) (vezi Meisel și Sachs, 1994; Witt și Insel, 1994; Stancampiano și colab., 1994; Argiolas și Melis, 1995, 2005; Argiolas, 1999; Bancila și colab., 2002; Giuliano și Rampin, 2000, McKenna, 2000; Andersson, 2001; Hull și colab., 2002; Coolen și colab., 2004).
Oxytocina, peptida neurohidrofizică bine cunoscută pentru rolul său hormonal în lactație și parturiție, este prezentă la femele și la bărbați, nu numai în neuronii cu corpuri celulare localizate în nucleele paraventriculare și superoptice ale hipotalamului care se proiectează la neurohidrofiză, dar și în neuronii care se proiectează de la nucleul paraventricular și structurile înconjurătoare până la zonele creierului extra-chotalamic (adică septul, zona tegmentală ventrală, hipocampul, amigdala, medulla oblongata și măduva spinării). Acești neuroni sunt considerați a fi implicați în numeroase funcții centrale, cum ar fi comportamentele de memorie, învățare, afiliere și socio-sexuală, inclusiv erecția penisului și comportamentul copulatoriu (vezi Buijs, 1978, Sofroniew, 1983, Argiolas și Gessa, 1991, Pedersen și colab. 1992, Carter, 1992, Wagner și Clemens, 1993, Ivell și Russel, 1995, Carter și colab., 1997, Tang și alții, 1998, Veronneau-Longueville și colab., 1999). Într-adevăr, oxitocina facilitează funcția erectilă și comportamentul sexual masculin la șoareci, șobolani, iepuri și maimuțe (vezi Argiolas și Gessa, 1991, Carter, 1992, Pedersen și alții, 1992, Argiolas și Melis, 1995, 2004, Argiolas, 1999). Acest lucru poate apărea și la om, deoarece oxitocina plasmatică este crescută prin stimulente sexuale, în special la ejaculare (Carmichael et al., 1987; Murphy și colab., 1987) și prin manipularea sânului și a organelor genitale, (Tindall, 1974).
Un efect facilitat al oxitocinei asupra comportamentului sexual masculin a fost demonstrat mai întâi de capacitatea oxitocinei intravenoase de a reduce latența la prima ejaculare și de a întârzia epuizarea sexuală a iepurilor masculi împerecheați cu femele receptive (Melin și Kihlstrom, 1963). Cu toate acestea, efectele sexuale ale oxitocinei au fost recunoscute definitiv abia în anii optzeci. Oxytocina administrată central în cantități de nanograme a fost apoi capabilă să inducă erecția penisului (Argiolas și colab., 1985, 1986) și să amelioreze comportamentul copulator (Arletti și colab., 1985) la șobolanii masculi și să crească lordoza la șobolani femele (Arletti și Bertolini, 1985, Caldwell și colab., 1986), aparent prin acțiunea receptorilor oxitocinergici de tip uterin (vezi Argiolas și Melis, 1995, 2004, Argiolas, 1999, Melis și Argiolas, 2003 și referințele din acestea). Oxytocinul îmbunătățește comportamentul sexual nu numai la șobolanii masculi potenți sexual (Arletti și colab., 1985), dar și la șobolanii masculi vârstnici (Arletti și colab., 1990) și la maimuțele dominante, dar nu subordonate masculilor veveriți (Winslow și Insel , 1991).
Efectul pro-erectil al oxitocinei este dependent de testosteron, deoarece este abolit prin hipofizectomie și castrare și restabilit prin suplimentarea cu testosteron sau metaboliții săi, estradiol și 5_-dihidrotestosteron administrate împreună (Melis și colab., 1994a). Cea mai sensibilă zonă a creierului pentru inducerea erecției peniene de către oxitocină este nucleul paraventricular al hipotalamusului (Melis și colab., 1986), din care provin toate proiecțiile oxitocinergice extra-hipotalamice (vezi mai sus). Aici, s-a constatat că oxitocina este capabilă să inducă erecția peniană (și căscatul) atunci când este injectată în doze de până la 3 pmol (vezi Secțiunea 2.1 de mai jos). Oxitocina a indus erecția peniană și atunci când a fost injectată bilateral în câmpul CA1 al hipocampului, dar nu și în subiculul dorsal (vezi secțiunea 2.3 de mai jos), septul lateral, nucleul caudat, zona preoptică medială, nucleul ventromedial al hipotalamusului și nucleul supraoptic (Melis și colab., 1986). În ceea ce privește mecanismul prin care oxitocina acționează în nucleul paraventricular pentru a induce acest răspuns sexual, numeroase studii sugerează că oxitocina își activează proprii neuroni. În conformitate cu această ipoteză, interacțiunea sexuală crește FOS, produsul genetic al genei c-fos imediat timpurii în neuronii oxitocinergici paraventriculari care se proiectează spre măduva spinării, care sunt implicați în controlul erecției peniene (vezi Witt și Insel, 1994 și referințele aferente), iar impotența sexuală (de exemplu, incapacitatea unui șobolan mascul adult de a copulează cu o femelă receptivă la estrogen-progesteron și ovariectomizată) a fost asociată la șobolanul mascul cu niveluri scăzute de ARNm al oxitocinei în nucleul paraventricular al hipotalamusului (Arletti și colab., 1997).
În prezent, nu este clar dacă oxitocina influențează faza anticipatorie sau faza consumatoare a comportamentului sexual . Deoarece oxitocina induce erecția peniană, iar principalul efect al oxitocinei asupra comportamentului copulator este o scădere a intervalului post-ejaculator la șobolanii masculi (Arletti și colab., 1985), este rezonabil să presupunem că peptida îmbunătățește performanța sexuală. Cu toate acestea, deoarece oxitocina crește și interacțiunea socio-sexuală (vezi Pedersen și colab., 1992; Carter și colab., 1997; Ivell și Russel, 1995), iar antagoniștii receptorilor de oxitocină previn erecțiile fără contact (Melis și colab., 1999a), care sunt considerate un indice al excitației sexuale (vezi Sachs, 1997, 2000, 2007; Melis și colab., 1998, 1999b și referințele aferente), nu poate fi exclus un posibil rol al oxitocinei în excitația sexuală și motivația sexuală.
Această analiză sintetizează rezultatele publicate și nepublicate ale studiilor recente, care arată că oxitocina induce erecția peniană nu numai atunci când este injectată în nucleul paraventricular al hipotalamusului, ci și în alte zone cerebrale extra-hipotalamice, cum ar fi zona tegmentală ventrală (Melis și colab., 2007, 2009a; Succu și colab., 2008), subiculul ventral al hipocampului și nucleul posterior al amigdalei (Melis și colab., 2009b, 2010), care sunt constituenți importanți ai sistemului limbic și se crede că joacă un rol cheie în procesele de motivație și recompensă. Aceste studii arată că oxitocina participă la circuitele neuronale, care includ alți neurotransmițători, cum ar fi dopamina și acidul glutamic, și alte zone cerebrale altele decât nucleul paraventricular, de exemplu, zona tegmentală ventrală, nucleul accumbens, hipocampul și zone care urmează să fie identificate. Aceste circuite sunt susceptibile să mediază o interacțiune între sistemul dopaminergic mezolimbic și cel incerto-hipotalamic și să joace un rol nu numai în faza consumatoare a comportamentului sexual masculin (de exemplu, erecția și copulația penisului), ci și în motivația sexuală și excitația sexuală, oferind astfel un substrat neural pentru explicarea proprietăților motivaționale și recompensatoare ale activității sexuale.
2. Oxitocina influențează erecția penisului acționând în diferite zone ale creierului
2.1. Nucleul paraventricular al hipotalamusului
Așa cum am amintit mai sus, nucleul paraventricular al hipotalamusului a fost în curând identificat drept zona creierului cel mai sensibilă pentru efectul pro-erectil al oxitocinei. Atunci când a fost injectat unilateral în acest nucleu, oxitocina a fost găsită activă la doze la fel de scăzute ca 3 ng (3 pmol) (Melis și colab., 1986). Studiile privind relațiile structurale-activitate au arătat că erecția penitului indusă de oxitocină a fost mediată de receptorii de oxitocină uterinetă, cuplați la un influx de Ca2 + în corpurile celulare ale neuronilor oxitocinergici care se proiectează în zone extra-hipotalamice ale creierului și la activarea oxidazei de azot-sintază. Oxidul nitric, la rândul său, acționând ca un mesager intracelular cu un mecanism încă necunoscut (care nu implică guanilat ciclaza) conduce la activarea neuronilor oxitocinergici care se proiectează în zona maduvei spinării și extra-hipotalamice, inducând erecția penisului (vezi 1) de mai jos și Argiolas și Melis, 1995, 2004, 2005 și referințele din acestea). Capacitatea oxitocinei de a-și activa propriii neuroni
Fig. 1. (MISSING) Reprezentarea schematică a neuronilor oxitocinergici, care provine din nucleul paraventricular al hipotalamusului și se proiectează în zone extra-hipotalamice ale creierului, cum ar fi maduva spinării, VTA, hipocampul, amigdala etc. Activarea acestor neuroni prin dopaminei, aminoacizilor excitatori, oxitocinei în sine, peptidelor analogice hexarelinice și peptidelor derivate de la VGF conduce la erecția penisului, care poate fi redusă și / sau abolită prin stimularea receptorilor CBBNUMX GABAergici, opioizi și canabinoizi. Activarea neuronilor oxitocinergici este secundară activării oxidului nitric-sintazei prezente în acești neuroni. Într-adevăr, oxidul nitric endogen format prin stimularea dopaminei, a receptorilor de oxitocină excitator sau oxid de azot exogen, ca cel derivat din donatorii de oxid nitric dați direct în nucleul paraventricular, activează neuronii oxitocinergici printr-un mecanism încă neidentificat, stimularea guanilate ciclazei. Acest lucru cauzează, la rândul său, eliberarea de oxitocină în măduva spinării și în zone extra-hipotalamice ale creierului. Unele detalii cu privire la mecanismele prin care oxitocina induce erecția penisului atunci când este eliberată în aceste zone, de exemplu, VTA, subculul ventral și amigdala sunt descrise în secțiunile respective ale zonei creierului. Aici, oxitocina acționează asupra propriilor receptori și crește producția de NO, ceea ce duce la erecția penisului așa cum se găsește în PVN. Cu toate acestea, în varianta PVN, în VTA NO caudal activă guanilate ciclază. Aceasta determină o creștere a concentrației cGMP care conduce la activarea neuronilor dopaminergici mezolimbici și la erecția penisului. În VS NU se activează neuronii glutamatergici care se proiectează în zone extra-hipocampale, inclusiv VTA. Acidul glutamic din VTA activează, la rândul său, neuronii dopaminergici mezolimbici, așa cum se găsesc cu oxitocină. Mecanisme similare celor descrise mai sus sunt susceptibile de a funcționa și atunci când erecția penisului are loc în contexte fiziologice, și anume când șobolanii masculi sunt plasați în prezența unei femei receptoare inaccesibile (de exemplu, erecții necontacte) sau în timpul copulației.
În nucleul paraventricular a fost susținută de studii care au arătat că: (1) receptorii oxitocinei sunt prezenți în acest nucleu hipotalamic (Freund-Mercier și colab., 1987; Freund-Mercier și Stoeckel, 1995); (2) oxitocina facilitează propria eliberare in vitro și in vivo (Freund-Mercier și Richard, 1981, 1984; Moos și colab., 1984); și (3) oxitocina își excită proprii neuroni acționând în nucleul paraventricular (Yamashita și colab., 1987). Mai mult, sinapsele oxitocinergice care afectează corpurile celulare ale neuronilor oxitocinergici magnocelulari au fost identificate și în nucleul paraventricular și supraoptic al hipotalamusului (Theodosis, 1985). În cele din urmă, distrugerea neuronilor oxitocinergici centrali prin leziuni excitotoxice electrolitice sau chimice ale nucleului paraventricular, care epuizează complet conținutul de oxitocină din sistemul nervos central și măduva spinării, elimină nu numai efectul proerectil al oxitocinei, ci și afectează erecția peniană indusă de medicamente și erecțiile fără contact (vezi mai jos și Argiolas și colab., 1987a,b; Liu și colab., 1997 și referințele aferente). Rezultate similare cu cele observate în cazul leziunilor nucleului paraventricular se găsesc și în cazul antagoniștilor receptorilor de oxitocină potenți și selectivi. Într-adevăr, acești compuși injectați în nucleul paraventricular în cantități de nanograme au prevenit complet erecția peniană indusă de oxitocină, în timp ce administrați în ventriculii laterali au prevenit nu numai erecțiile peniene induse de oxitocină în sine, ci și erecția peniană indusă de medicamente (vezi Secțiunea 3 de mai jos și Argiolas și Melis, 1995, 2004, 2005 și referințele aferente) și erecțiile fără contact (Melis și colab., 1999a) și, în plus, au fost extrem de eficienți în afectarea comportamentului copulator al șobolanilor masculi cu potență sexuală (Argiolas și colab., 1988). În plus, interacțiunea sexuală crește FOS, produsul genetic al genei c-fos imediat timpurii în neuronii oxitocinergici paraventriculari care se proiectează către măduva spinării implicată în controlul erecției peniene (vezi Witt și Insel, 1994 și referințele aferente). În cele din urmă, impotența sexuală (de exemplu, incapacitatea unui șobolan mascul adult de a copulează cu o femelă receptivă la hormonii estrogen-progesteron) a fost, de asemenea, asociată la șobolanul mascul cu niveluri scăzute de ARNm al oxitocinei și de sintază a oxidului nitric în nucleul paraventricular al hipotalamusului (Benelli et al., 1995; Arletti et al., 1997) (pentru o analiză extinsă a acestor studii, vezi Argiolas, 1999; Argiolas și Melis, 2004, 2005).
2.2. Suprafața tegmentală ventrală
Zona tegmentală ventrală a fost descoperită recent ca situs cerebral în care oxitocina induce erecția peniană . Această zonă conține terminații nervoase oxitocinergice originare din nucleul paraventricular și receptori de oxitocină (Freund-Mercier et al., 1987; Vaccari et al., 1998). Mai precis, s-a constatat că oxitocina este capabilă să inducă erecția peniană atunci când este injectată unilateral în zona caudală, dar nu și în zona tegmentală ventrală rostrală într-un mod dependent de doză (Melis et al., 2007). Dozele active au fost mai mari decât cele necesare atunci când sunt injectate în nucleul paraventricular și similare cu cele care induc erecția peniană atunci când sunt injectate în subiculul ventral al hipocampului sau în nucleul cortical posteromedial al amigdalei (vezi mai jos). Se pare că efectul pro-erectil este mediat de activarea neuronilor dopaminergici mezolimbici care se proiectează către învelișul nucleului accumbens, care, la rândul său, activează căi neuronale încă necunoscute care se proiectează către neuronii dopaminergici incerto-hipotalamici care afectează neuronii oxitocinergici paraventriculari care mediază erecția peniană (Melis și colab., 2007, 2009a).
În ceea ce privește mecanismul prin care oxitocina activează neurotransmisia dopaminergică în zona tegmentală ventrală, datele disponibile sugerează că oxitocina stimulează receptorii oxitocinergici localizați în corpurile celulare ale neuronilor dopaminergici mezolimbici. Acest lucru crește influxul de Ca2+ în interiorul corpurilor celulare ale neuronilor dopaminergici, activând astfel oxid nitric-sintetaza (Succu et al., 2008). Spre deosebire de nucleul paraventricular (vezi Secțiunea 3 de mai jos), oxidul nitric activează la rândul său guanilat ciclaza, crescând astfel concentrația de GMP ciclic. În conformitate cu acest mecanism, fie d(CH2)5Tyr(Me)2-Orn8-vasotocina, un antagonist puternic al oxitocinei, fie S-metil-tio-l-citrulina, un inhibitor puternic al oxidului nitric-sintetazei neuronale, injectate în zona tegmentală ventrală caudală înainte de oxitocină, au abolit erecția peniană și creșterea concentrației extracelulare de dopamină în învelișul nucleului accumbens indusă de oxitocină. Mai mult, GMP-ul 8-bromociclic, un analog activ al GMP ciclic rezistent la fosfodiesterază, induce erecția peniană atunci când este injectat în zona tegmentală ventrală caudală și crește concentrația extracelulară de dopamină în învelișul nucleului accumbens, așa cum s-a observat în cazul oxitocinei injectate în zona tegmentală ventrală caudală (Succu et al., 2008; Melis et al., 2009a) (vezi și Fig. 2).
Întotdeauna în conformitate cu acest mecanism, haloperidolul, un puternic antagonist al receptorilor dopaminergici D2, injectat în învelișul nucleului accumbens, reduce erecția peniană indusă de oxitocina injectată în zona tegmentală ventrală (Melis et al., 2007). Mecanismul de mai sus este susținut și de studii cu dublă imunofluorescență, care arată că fibrele de oxitocină ating corpurile celulare ale neuronilor dopaminergici din zona tegmentală ventrală caudală, care au fost marcate anterior cu trasorul retrograd Fluorogold injectat în învelișul nucleului accumbens (Melis et al., 2007; Succu et al., 2008). Activările acestor neuroni dopaminergici și ale receptorilor dopaminergici din nucleul accumbens duc, la rândul lor, la activarea unor căi neuronale încă neidentificate, care stimulează neuronii dopaminergici incerto-hipotalamici să elibereze dopamină în nucleul paraventricular, activând astfel neuronii oxitocinergici care se proiectează spre măduva spinării și mediază erecția peniană (vezi mai sus și Melis et al., 2007; Succu et al., 2007, 2008). Într-adevăr, oxitocina injectată în zona tegmentală ventrală caudală, la o doză care a indus erecția peniană, a crescut concentrația extracelulară de dopamină în dializatul obținut nu numai din nucleul accumbens, ci și din nucleul paraventricular (Succu et al., 2007).
2.3. Hipocampul
Câmpul CA1 al hipocampului a fost cealaltă zonă a creierului bogată în fibre și receptori oxitocinergici identificați de studiile anterioare în care injectarea de oxitocină a indus erecția peniană (vezi Bujis, 1978; Sofroniew, 1983). Cu toate acestea, spre deosebire de nucleul paraventricular, aici s-a constatat că oxitocina este capabilă să inducă erecția peniană numai atunci când este injectată bilateral și în doze mai mari decât cele active în nucleul paraventricular (Melis și colab., 1986; Chen și colab., 1992). Injecțiile de oxitocină în subicul s-au dovedit inactive în aceste studii anterioare. Cu toate acestea, studii recente și mai atente de microinjecție au condus la identificarea unei regiuni a subiculului ventral în care injectarea de oxitocină a fost capabilă să inducă erecția peniană într-un mod dependent de doză (Melis și colab., 2009b). Efectul pro-erectil al oxitocinei injectate în această zonă a creierului a fost observat la doze similare cu cele găsite active în zona tegmentală ventrală după injectarea unilaterală (Melis și colab., 2007), așa cum s-a observat și în nucleul paraventricular. Se pare că oxitocina injectată în subiculul ventral induce erecția peniană prin activarea receptorilor oxitocinergici din neuronii care conțin oxid nitric-sintetază, provocând o creștere a producției de oxid nitric. La rândul său, oxidul nitric, acționând ca mesager intercelular, activează neurotransmisia acidului glutamic, ducând la erecția peniană, posibil prin proiecții eferente neuronale (glutamatergice) din subiculul ventral către zone cerebrale extra-hipocampice, modulând activitatea neuronilor dopaminergici mezolimbici (de exemplu, zona tegmentală ventrală, cortexul prefrontal, nucleul paraventricular) (vezi mai jos și Melis, 2007, 2009b; Succu și colab., 2008).
Acest mecanism de acțiune este susținut de experimentele intra-cerebrale de microdializă, care arată că oxitocina injectată în subculumul ventral la doze care induc erecția penisului, crește producția de oxid nitric și concentrația acidului glutamic extracelular în dializat din subiculul ventral (Melis și colab. , 2010) și a dopaminei extracelulare în nucleul accumbens (Melis și colab., 2007). Aceste răspunsuri au fost antagonizate nu numai de antagonistul receptorului de oxitocină d (CH2) 5Tyr (Me) 2-Orn8-vasotocină, dar și de inhibitorul neuronal de oxid de azot-sintetază S-metil-tio-lcitrullină și de hemoglobina în subiculul ventral cu câteva minute înainte de oxitocină (Melis și colab., 2010).
Mai mult, în conformitate cu acest mecanism de acțiune, activarea neurotransmisiei glutamatergice prin NMDA injectat în subiculul ventral induce erecția peniană (Melis și colab., 2010). Fenotipul proiecțiilor eferente din subiculul ventral, care determină activarea neuronilor dopaminergici mezolimbici și creșterea dopaminei extracelulare în nucleul accumbens, este necunoscut în prezent. Totuși, deoarece erecția peniană indusă de oxitocină injectată în subiculul ventral are loc concomitent cu o creștere a acidului glutamic extracelular în dializat din zona tegmentală ventrală, dar nu din nucleul accumbens și este antagonizată de (+)MK-801, un puternic antagonist necompetitiv al receptorilor de aminoacizi excitatori de subtip NMDA (Woodruff et al., 1987), injectat în zona tegmentală ventrală, dar nu în nucleul accumbens (vezi Fig. 2 și Melis et al., 2009b), este probabil ca aceste proiecții să conducă la activarea neurotransmisiei glutamatergice în zona tegmentală ventrală, care la rândul său activează neuronii dopaminergici mezolimbici care se proiectează către nucleul accumbens. În prezent, nu se știe dacă concentrația crescută de acid glutamic găsită în zona tegmentală ventrală după injectarea de oxitocină în subiculul ventral este eliberată de neuronii care își au originea în subicul sau în alte zone ale creierului (de exemplu, cortexul prefrontal). Cu toate acestea, acest lucru provoacă activarea neuronilor dopaminergici mezolimbici și o eliberare crescută de dopamină în nucleul accumbens . Aici, activarea receptorilor dopaminergici duce la activarea neuronilor dopaminergici incerto-hipotalamici, eliberând dopamină în nucleul paraventricular, activând astfel neuronii oxitocinergici care se proiectează spre măduva spinării și mediază erecția peniană (vezi mai sus și Melis și colab., 2007, 2009a; Succu și colab., 2008).
2.4. Amigdala
Amigdala este o altă zonă a creierului bogată în fibre și receptori ai oxitocinei (vezi Freund-Mercier și colab., 1987, Vaccari și colab., 1998, Uhl-Bronner și colab., 2005). Se presupune că oxitocina este implicată în diferite funcții, de la anxioliză, memorie socială și cunoaștere, învățare consolidată social, empatie emoțională, prelucrare a feței emoționale și frică la om la funcția erectilă și la comportamentul sexual (vezi Kondo et al., 1998, Dominguez et. al., 2001, Ebner ș.a., 2005, Huber și colab., 2005, Domes și colab., 2007, Petrovic și colab., 2008, Lee și colab., 2009, Donaldson și Young, 2009; Hurlemann și colab. , 2010). Cu toate acestea, abilitatea oxitocinei de a induce erecția penisului la șobolanii masculi atunci când a fost indusă în nucleul cortexului posterior al amigdalei a fost descoperită abia recent (Melis și colab., 2009b). Acest răspuns a apărut concomitent cu o creștere a concentrației de dopamină extracelulară în dializatul obținut din coaja nucleului accumbens, așa cum s-a constatat după injectarea oxitocinei în subiculul ventral (Melis și colab., 2009b). Mecanismul prin care oxitocina injectată în nucleul cortexului posterior al amigdalei induce erecția penisului este necunoscută în momentul de față. Datele disponibile arată că atât erecția penisului cât și creșterea concentrației de dopamină extracelulară în dializatul obținut din nucleul accumbens sunt mediate de activarea receptorilor oxitocinergici, ambele răspunsuri fiind eliminate de către antagonistul receptorului de oxitocină d (CH2) 5Tyr Me) 2-Orn8-vasotocina injectată în nucleul amigdală cu câteva minute înainte de oxitocină (Melis și colab., 2009b).
Indiferent de mecanismul pe care îl activează oxitocina în nucleul cortical posteromedial al amigdalei, răspunsul sexual indus de peptidă este abolit prin blocarea tuturor receptorilor dopaminergici cu cis-flupentixol injectat în învelișul nucleului accumbens și prin blocarea receptorilor NMDA cu (+)MK-801 injectat în zona tegmentală ventrală, dar nu și în nucleul accumbens, așa cum s-a constatat în cazul erecției peniene induse de oxitocină injectată în subiculul ventral (Melis et al., 2009b). Acest lucru sugerează că oxitocina injectată în nucleul posteromedial al amigdalei activează neurotransmisia acidului glutamic în zona tegmentală ventrală. Aceasta provoacă, la rândul său, activarea neuronilor dopaminergici mezolimbici, ducând la erecția peniană. Având în vedere studiile care arată căi neuronale care interconectează acest nucleu al amigdalei cu subiculul ventral (Canteras și colab., 1995; French și Totterdell, 2003), aceste descoperiri ridică posibilitatea existenței unei interacțiuni între aceste două zone ale creierului, deși au fost descrise căi directe de la amigdală fie către nucleul accumbens, fie către zona tegmentală ventrală (Kelley și Domesick, 1982; Witter, 2006).
2.5. Măduva spinării
Măduva spinării este o altă zonă a sistemului nervos central care conține fibre oxitocinergice și receptori (Freund-Mercier și colab., 1987; Uhl-Bronner și colab., 2005), în care oxitocina induce erecția penisului (Tang și colab., 1998 , Veronneau-Longueville și colab., 1999, Giuliano și Rampin, 2000, Giuliano și colab., 2001). Așa cum am amintit mai sus, aceste fibre oxitocinergice provin din nucleul paraventricular al hipotalamusului și contribuie la căile descendente care controlează neuronii autonomi spinali care mediază erecția penisului. Într-adevăr, aceste fibre produc contacte sinaptice în coloanele celulelor simpatic și parasimpatic ale cornului dorsal, în tractul toraco-lombar și lumbo-sacral, cu neuroni spinali inervați corporații cavernoase penisului (Marson și McKenna, 1996, Giuliano și Rampin, 2000, Giuliano și colab. , 2001). Aceste contacte sinaptice au fost demonstrate prin etichetarea neuronilor spinali originari din penis și prin atingerea măduvei spinării cu markeri retrogradici specifici injectați în corporații cavernoase, combinate cu studii de imunofluorescență dublă și microscopie confocală cu laser (Tang et al., 1998, Veronneau-Longueville și colab., 1999). În concordanță cu aceste studii, la șobolanii masculi anesteziați, injecția intratecală a doze cumulative de oxitocină la nivelul lumbo-sacral, dar nu la nivelul toraco-lombar, a determinat o creștere a presiunii intracavernoase într-o manieră dependentă de doză. Aceste efecte au fost eliminate prin blocarea receptorului oxitocinergic cu d (CH2) 5Tyr (Me) 2-Orn8-vasotocin și prin secționarea nervilor pelvieni (Giuliano și Rampin, 2000, Giuliano și colab., 2001). Aceste rezultate demonstrează că oxitocina, acționând asupra măduvei spinării lumbo-sacrale, crește presiunea intracavernoasă și sugerează că oxitocina eliberată în timpul activării fiziologice a nucleului paraventricular este un activator potențial al neuronilor pro-erectili ai coloanei vertebrale care se proiectează în corpul cavernos. Interesant, acești neuroni spinali pro-erectili pe care oxitocina acționează pentru a-și exercita efectul pro-erectil primesc de asemenea contacte sinaptice din neuronii serotoninergici originari din nucleul paragigantocelular al formării reticulare a medulla oblongata (Marson și McKenna, 1992, Tang și colab. ., 1998). Distrugerea acestor neuroni serotoninergici facilitează ejacularea și reflexele penisului la șobolanii masculi (Marson și McKenna, 1992, Yells și colab., 1992). Deoarece medicamentele care stimulează receptorii 5HT2C facilitează erecția penisului atunci când sunt administrate intracerebroventricular, dar nu în nucleul paraventricular și medicamentele care blochează receptorii 5HT2C reduc și erecția penisului indusă de agoniști dopaminergici și oxitocină, în timp ce antagoniștii dopaminergici nu reduc erecția penisului indusă de agonist 5HT2C vezi Stancampiano et al., 1994 și referințele de mai sus), s-a sugerat, de asemenea, că oxitocina facilitează acțiunea receptorilor pro-erectili 5HT2C la nivelul măduvei spinării lumbo-sacrale (Stancampiano et al., 1994). Alternativ, oxitocina poate influența activitatea neuronilor serotoninergici coborâtori, acționând direct în nucleul paragigantocelular, unde provin acești neuroni (vezi Stancampiano et al., 1994). În conformitate cu această posibilitate, a fost descrisă o cale oxitocinergică care își are originea în nucleul paraventricular și ajunge la nucleul paragigantocelular al formațiunii reticulare din medulla oblongata (Bancila et al., 2002), iar activarea receptorilor 5HT2C localizați în măduva spinării, în aval de receptorii dopaminei și oxitocinei, este considerată un mecanism comun al efectului pro-erectil al acestor compuși și chiar al peptidelor ACTH-MSH (Kimura et al., 2008).
3. Interacțiunile dintre oxitocină, dopamină și acid glutamic în sistemul nervos central și erecția penisului
Așa cum s-a reamintit în Secțiunea 1, toți neuronii oxitocinergici prezenți în sistemul nervos central își au originea în nucleul paraventricular și în structurile înconjurătoare. Activitatea acestor neuroni este sub controlul diferiților neurotransmițători și/sau neuropeptide. Printre cei mai studiați la nivel paraventricular se numără dopamina, acidul glutamic, acidul gama-aminobutiric (GABA), oxidul nitric, endocanabinoizii, peptidele opioide, peptidele eliberatoare de hormon de creștere, peptidele legate de VGF și oxitocina însăși. Dopamina, acidul glutamic, peptidele eliberatoare de hormon de creștere, peptidele derivate din VGF și oxitocina sunt stimulatoare, de exemplu, acești compuși și agoniștii lor facilitează erecția peniană atunci când sunt injectați în nucleul paraventricular, în timp ce GABA, peptidele opioide și endocanabinoizii sunt inhibitori, de exemplu, acești compuși sau agoniștii lor inhibă erecția peniană (vezi Meisel și Sachs, 1994; Witt și Insel, 1994; Argiolas și Melis, 1995, 2004, 2005; Giuliano și Rampin, 2000, 2004; McKenna, 2000; Andersson, 2001; Hull și colab., 2002).
Mai multe linii de dovezi experimentale sugerează că acești neuroni oxitocinergici și neurotransmițătorii și neuropeptidele de mai sus sunt implicați în controlul funcției erectile și a comportamentului sexual în diferite contexte fiziologice. Mai mult, oxitocina eliberată în zone extra-hipotalamice ale creierului, cum ar fi zona tegmentală ventrală, hipocampul și regiunile sale, amigdala și măduva spinării pot influența activitatea acelor neuroni pe care influențează sinapsele oxitocinergice. În prezent, singurele neuroni importanți pentru erecția penisului, pe care influențează sinapsele oxitocinergice, identificate cu certitudine, sunt corpurile celulare ale neuronilor dopaminergici mezolimbici din zona tegmentală ventrală caudală proiectată în cochilia nucleului accumbens (Melis și colab., 2007 , Succu și colab., 2008) și neuronii pro-erectili spinali care se proiectează de la tractul lumbo-sacral la corpul cavernos (vezi Giuliano și Rampin, 2000, Giuliano și colab., 2001) (vezi și secțiunile 2.2 și 2.5) . Într-adevăr, deși au fost identificate sinapse și receptori oxitocinergici în subiculul ventral, amigdala și măduva spinării, zone care sunt toate importante pentru erecția penisului (vezi mai sus), în aceste zone tipul de neurotransmițători prezent în neuronii care suferă terminații nervoase oxitocinergice, sunt încă necunoscute.
Această secțiune a studiului rezumă pe scurt literatura recentă privind mecanismele care stau la baza efectului pro-erectil al oxitocinei injectate în zona tegmentală ventrală caudală, subiculul ventral al hipocampului și în măduva spinării. O atenție deosebită este acordată interacțiunii peptidei cu dopamina și acidul glutamic în aceste zone și rolului pe care această interacțiune îl poate juca în controlul central al funcției erectile. Mai întâi este prezentat un scurt rezumat al efectelor dopaminei și acidului glutamic asupra neuronilor oxitocinergici din nucleul paraventricular, care joacă, de asemenea, un rol cheie în funcția erectilă, pentru a informa cititorul despre stadiul incipient al cercetării în acest domeniu, deoarece aceste studii au fost deja analizate pe larg (vezi Argiolas și Melis, 1995, 2004, 2005; Melis și Argiolas, 2003). Și în acest caz, se acordă o atenție deosebită celor mai recente rezultate, care sugerează un rol important atât pentru o legătură dopamină-oxitocină, cât și pentru o legătură acid glutamic-oxitocină nu numai în performanța sexuală (erecția și copulația penisului), ci și în excitația sexuală și motivația sexuală.
3.1. Interacțiunea dopamino-oxitocină în nucleul paraventricular
Capacitatea agoniștilor dopaminergici de a induce erecția peniană prin activarea neuronilor oxitocinergici centrali a fost sugerată imediat după descoperirea faptului că apomorfina induce erecția peniană atunci când este injectată în nucleul paraventricular (Melis și colab., 1987), când antagonistul receptorului de oxitocină d(CH2)5Tyr(Me)2-Orn8-vasotocină injectată intracerebroventricular (icv) s-a dovedit a fi capabilă să reducă aproape complet erecția peniană indusă nu numai de oxitocină administrată icv, ci și de apomorfină administrată subcutanat (Argiolas și colab., 1987b). Aceste rezultate au fost urmate de cele ale altor studii care au arătat rezultate similare atunci când d(CH2)5Tyr(Me)2-Orn8-vasotocină a fost administrată icv și apomorfină a fost administrată direct în nucleul paraventricular (Melis și colab., 1989b), ceea ce duce la sugerarea faptului că agoniștii dopaminei induc erecția peniană prin activarea neuronilor oxitocinergici paraventriculari care se proiectează către zonele cerebrale extra-hipotalamice și în special către măduva spinării (vezi Argiolas și Melis, 1995, 2004, 2005). În conformitate cu această ipoteză, la șobolanii anesteziați, s-a descoperit recent că blocarea receptorilor oxitocinergici lombo-sacrali de către un antagonist non-peptidic al receptorilor de oxitocină este capabilă să elimine creșterile presiunii intracavernoase induse de apomorfină, induse de agonistul dopaminergic apomorfină, oferind dovezi pentru o cale oxitocinergică paraventriculo-spinală implicată în erecția peniană (Baskerville și colab., 2009).
Studiile care au vizat identificarea receptorului dopaminic responsabil de inducerea erecției peniene au relevat că, de asemenea, în nucleul paraventricular agoniștii receptorilor dopaminici induc erecția peniană acționând asupra receptorilor dopaminici din familia D2 , așa cum s-a observat în cazul agoniștilor receptorilor dopaminici administrați sistemic (vezi Melis și colab., 1987; Eaton și colab., 1991; Melis și Argiolas, 1995a). În consecință, s-a constatat că apomorfina, un agonist mixt puternic al receptorilor D1/D2, și quinpirolul, un agonist selectiv puternic al receptorilor D2, dar nu SKF 38393, un agonist selectiv al receptorilor D1, injectați în acest nucleu hipotalamic, au fost capabili să inducă erecția peniană într-o manieră dependentă de doză, iar răspunsul sexual indus de acești agoniști ai receptorilor D2 a fost abolit de antagoniștii receptorilor D2, cum ar fi haloperidolul și l-sulpirida, dar nu de SCH 23390, un antagonist selectiv al receptorilor D1 (Melis și colab., 1987). Capacitatea apomorfinei de a induce erecția peniană atunci când este injectată în nucleul paraventricular a fost confirmată și prin studii de telemetrie care au arătat că agonistul dopaminei administrat în nucleul paraventricular este capabil să crească presiunea intracavernoasă la șobolanii masculi treji fără a modifica tensiunea arterială sistemică (Chen și colab., 1999; Giuliano și Allard, 2001), așa cum s-a constatat după injectarea sistemică (Bernabè și colab., 1999). Aceste studii au confirmat, de asemenea, un rol principal al receptorilor D2, deoarece agoniștii receptorilor D1 s-au dovedit de obicei incapabili să crească presiunea intracavernoasă atunci când sunt injectați în nucleul paraventricular (Chen și colab., 1999).
Mai multe dovezi experimentale au fost disponibile apoi, sugerând că receptorii paraventriculari D2, a căror stimulare induce erecția peniană, sunt localizați pe corpurile celulare ale neuronilor oxitocinergici. În primul rând, nucleul paraventricular conține terminații nervoase dopaminergice care aparțin așa-numiților neuroni dopaminergici incertohipotalamici. Corpurile celulare ale acestor neuroni sunt situate în grupul A13 și A14 al lui Dahlstrom și Fuxe (1964), arborizează extensiv și inervează mai multe structuri hipotalamice, inclusiv neuroni oxitocinergici paraventriculari care se proiectează spre neurohipofiză și/sau spre zone cerebrale extra-hipotalamice (Buijs și colab., 1984; Lindvall și colab., 1984).
Implicarea acestor neuroni dopaminergici la nivelul paraventricular în controlul erecției și copulației penisului este susținută de studii de microdializă care arată că concentrațiile dopaminei extracelulare și a acidului 3,4-dihidroxifenilacetic (DOPAC), principalul său metabolit, sunt crescute în dializatul obținut de la nucleul paraventricular al șobolanilor masculi potenți sexual prezentând erecții necontacte atunci când este prezent în prezența unei femei femele receptive ovarectomizate ovariectomizate + primare progesteron (Melis și colab., 2003).
Creșterea concentrațiilor de dopamină și DOPAC a fost chiar mai mare atunci când a fost permisă copulația cu femela receptivă (Melis și colab., 2003), așa cum s-a observat în zona preoptică medială (Hull și colab., 1995) și în nucleul accumbens (Pfaus și Everitt, 1995). În al doilea rând, mai multe studii arată că erecția peniană indusă de stimularea receptorilor paraventriculari D2 este mediată de oxitocină eliberată în aceste zone. În consecință, s-a constatat că apomorfina administrată în doze care induc erecția peniană poate crește concentrația de oxitocină nu numai în plasma șobolanilor și maimuțelor (Melis și colab., 1989a; Cameron și colab., 1992), ci și în zonele cerebrale extra-hipotalamice, cum ar fi hipocampul (Melis și colab., 1990). În conformitate cu aceste rezultate, s-a demonstrat recent că apomorfina injectată în nucleul paraventricular într-o doză care induce erecția peniană este capabilă să crească și concentrația extracelulară de dopamină în nucleul accumbens, efect redus de antagonistul receptorilor de oxitocină d(CH2)5Tyr(Me)2-Orn8-vasotocină injectată în zona tegmentală ventrală (Succu et al., 2007; Melis et al., 2009a) (vezi și Secțiunea 4). În al treilea rând, leziunile electrolitice bilaterale ale nucleului paraventricular, care elimină aproape complet oxitocina din zonele cerebrale extra-hipotalamice (Hawthorn și colab., 1985), abolesc erecția peniană indusă de apomorfină (Argiolas și colab., 1987a), iar antagoniștii selectivi ai receptorilor de oxitocină administrați în ventriculii laterali, dar nu și în nucleul paraventricular, reduc erecția peniană indusă de apomorfină dependentă de doză, cu o potență paralelă cu cea a acestor compuși în blocarea receptorilor de oxitocină (Melis și colab., 1989b). Antagoniștii receptorilor de oxitocină sunt, de asemenea, extrem de puternici în reducerea facilitării comportamentului sexual masculin indus nu numai de oxitocină, ci și de apomorfină (Argiolas și colab., 1988, 1989).
În ceea ce privește mecanismul prin care receptorii D2 activați de dopamină sau de agoniștii receptorilor dopaminergici cresc activitatea neuronilor oxitocinergici, eliberând astfel oxitocină în zonele cerebrale extrahipotalamice și în măduva spinării, numeroase date experimentale susțin ipoteza că stimularea receptorilor D2 crește concentrația de ioni de Ca2+ intracelulari în interiorul corpurilor celulare ale neuronilor oxitocinergici, ducând la activarea oxidului nitric-sintazei, o enzimă dependentă de Ca2+-calmodulină, prezentă în aceste corpuri celulare (Vincent și Kimura, 1992; Torres și colab., 1993; Sanchez și colab., 1994; Sato-Suzuki și colab., 1998). Creșterea producției de oxid nitric determină, la rândul ei, activarea neuronilor oxitocinergici. În consecință, (1) erecția peniană indusă de apomorfină a fost prevenită de blocante organice ale canalelor de calciu și de β-conotoxină GVIA, un blocant puternic și selectiv al canalelor de Ca2+ dependente de voltaj de tip N (McCleskey și colab., 1987), administrat în nucleul paraventricular (vezi Argiolas și colab., 1990 și referințele aferente); (2) erecția peniană indusă de apomorfină a fost prevenită de inhibitori ai oxidului nitric-sintazei administrați în nucleul paraventricular (Melis și colab., 1994c); și (3) apomorfina și alți agoniști ai receptorilor D2 administrați în doze care induc erecția peniană au crescut producția de oxid nitric în dializatul paraventricular obținut prin microdializă intracerebrală, o creștere care a fost redusă de inhibitori ai oxidului nitric-sintazei paraventriculare administrați în doze care reduc erecția peniană indusă de agonistul receptorilor D2 (Melis și colab., 1996). Mecanismul prin care oxidul nitric activează neuronii oxitocinergici paraventriculari este încă necunoscut, deși datele disponibile sugerează că oxidul nitric acționează ca un mesager intracelular și că guanilat ciclaza nu este implicată. Într-adevăr, s-a constatat că analogul activ rezistent la fosfodiesteraze al GMP ciclic, GMP 8-bromo-ciclic, nu poate induce erecția peniană atunci când este administrat în nucleul paraventricular (Fig. 2) (vezi Melis și Argiolas, 1995b și referințele aferente).
Interpretarea de mai sus a fost adesea considerată neconvingătoare, în principal pentru că stimularea receptorilor dopaminergici D2 este de obicei cuplată cu inhibarea, mai degrabă decât cu excitarea, a corpurilor celulare ale neuronilor care conțin acești receptori prin diferite mecanisme cuplate cu proteina G (vezi Sokoloff și Schwartz, 1995). Cu toate acestea, o posibilă explicație pentru această discrepanță, care este în concordanță cu o stimulare directă a neuronilor oxitocinergici paraventriculari de către dopamină, a fost sugerată recent prin descoperirea unui receptor dopaminergic D4 cuplat cu proteina G , un membru al familiei receptorilor D2 (D2, D3 și D4), a cărui stimulare crește influxul de Ca2+ în preparatele celulare care conțin o versiune clonată a acestui subtip de receptor (Moreland și colab., 2004). Mai important, s-a constatat că un agonist selectiv al receptorului D4 (de exemplu, ABT 724) (maleat de N-metil-4-(2-cianofenil)piperazinil-3metilbenzamidă) este capabil să inducă erecția peniană la șobolanii masculi atunci când este administrat sistemic (Brioni și colab., 2004). Acest efect nu a fost observat în cazul agonistului selectiv al subtipului receptorului D2 PNU-95666E (R-5,6-dihidro-N,N-dimetil-4Himidazo[4,5,1-i]chinolin-5-amină) (Hsieh et al., 2004), care, de asemenea, nu a reușit să crească influxul de Ca2+ în preparatele celulare care conțin versiunea clonată a subtipului receptorului D4 (Brioni et al., 2004; Moreland et al., 2004). În conformitate cu ipoteza și constatările de mai sus, s-a constatat că PD 168,077 (maleat de N-metil-4-(2-cianofenil)piperazinil-3metilbenzamidă), PIP-3EA (2-[4-(2-metoxifenil)piperazin-1-ilmetil]imidazo[1,2-a]piridină) și alți agoniști selectivi ai receptorilor D4 (Heier și colab., 1997; Melis și colab., 2006b; Löber și colab., 2009) pot induce erecția peniană atunci când sunt injectați sistemic, icv și în nucleul paraventricular, deși mai puțin eficient decât apomorfina. Efectul pro-erectil al acestor agoniști ai receptorilor D4 a fost prevenit de L-745,870 (3-(4-[clorofenil] piperazin-1-il)-metil-1H-pirolo[2,3-B]piridină triclorhidrat), un antagonist selectiv al receptorilor D4 (Patel și colab., 1997; Melis și colab., 2005, 2006b; Löber și colab., 2009).
În cele din urmă, efectul pro-erectil al agoniștilor receptorului D4 de mai sus a fost de asemenea redus prin inhibitori ai oxidului de azot-sintază, administrat în nucleul paraventricular, și prin antagonist selectiv al receptorului de oxitocină d (CH2) 5Tyr (Me) 2-Orn8-vasotocin dat icv, dar nu în nucleul paraventricular. Aceste rezultate sunt în concordanță cu ipoteza că agoniștii receptorului D4 stimulează, de asemenea, neuronii oxitocinergici prin activarea oxidazei de azot-sintază și eliberarea oxitocinei în zonele creierului extrahospotalamic, care la rândul său facilitează erecția penisului, așa cum este arătat pentru agoniștii de tip apomorfină și clasic D2 (Melis și colab. ., 2005, 2006b; Löber și colab., 2009).
Constatările de mai sus susțin, de asemenea, ipoteza că dopamina induce erecția peniană prin acțiunea asupra receptorilor D4 situați pe corpurile celulare ale neuronilor oxitocinergici paraventriculari și care determină un influx crescut de Ca2+ în corpurile celulare ale neuronilor oxitocinergici, ducând la o producție crescută de oxid nitric. Oxidul nitric, la rândul său, activează neuronii oxitocinergici pentru a elibera oxitocină în zonele cerebrale extra-hipotalamice și în măduva spinării, așa cum s-a discutat deja. În acest sens, este demn de remarcat faptul că receptorii dopaminei au fost identificați în corpurile celulare ale neuronilor oxitocinergici din nucleul paraventricular abia recent prin studii de imunofluorescență dublă cu anticorpi selectivi pentru receptorii D2, D3 și D4 și cu anticorpi anti-oxitocină. Aceste studii au demonstrat exprimarea tuturor celor trei subtipuri de receptori D2 (D2, D3 și D4), care s-au co-localizat separat în corpurile celulare ale neuronilor oxitocinergici din nucleul paraventricular (și, de asemenea, în nucleul supraoptic și zona preoptică medială) (Baskerville și Douglas, 2008; Baskerville și colab., 2009).
Acest lucru oferă un sprijin neuroanatomic puternic pentru posibilitatea ca dopamina și agoniștii receptorilor dopaminergici de tip D2 să inducă erecția peniană prin activarea directă a neuronilor oxitocinergici care se proiectează către zonele cerebrale extrahipotalamice menționate mai sus , de exemplu, măduva spinării, zona tegmentală ventrală, hipocampul și amigdala. Cu toate acestea, aceste descoperiri nu oferă niciun ajutor pentru identificarea subtipului/subtipurilor de receptori D2, a căror stimulare provoacă răspunsul erectil. Din păcate, niciun ajutor nu poate fi obținut nici măcar din studiile care vizează identificarea neuronilor oxitocinergici activați de agoniștii receptorilor dopaminergici în nucleul paraventricular. Într-adevăr, în ciuda activității diferite asupra diferitelor subtipuri de receptori ai dopaminei, fie agoniștii mixți ai receptorilor dopaminei (de exemplu, apomorfina), fie agoniștii selectivi ai receptorilor D2 (de exemplu, quinpirolul, care acționează asupra tuturor subtipurilor de receptori D2) sau agoniștii selectivi ai receptorilor D4 determină activarea neuronilor oxitocinergici, măsurată prin creșterea proteinei FOS în neuronii oxitocinergici parvocelulari ai nucleului paraventricular (Bitner și colab., 2006). Cu toate acestea, această constatare a fost recent pusă sub semnul întrebării, deoarece creșterea proteinei FOS în neuronii oxitocinergici paraventriculari a fost constatată numai atunci când erecția peniană a fost indusă de quinerolan, care acționează în principal asupra subtipurilor de receptori D2 și D3, dar nu de PD 168077, un agonist al receptorilor D4, în ciuda capacității ambilor compuși de a induce răspunsul sexual (Baskerville și colab., 2009).
În continuare sunt necesare experimente suplimentare cu agoniști selectivi ai celorlalte subtipuri de receptor D2 (în principal D2 și D3) pentru a identifica rolul exact al fiecărui subtip de receptor de dopamină în controlul funcției erectile la nivelul paraventricular. În acest sens, așa cum s-a amintit mai înainte, apomorfina, care acționează puternic asupra tuturor subtipurilor de receptor dopaminic (vezi Brioni și colab., 2004 și referințele din aceasta), este mult mai eficace decât agoniștii receptorilor D4 în inducerea erecției penile atunci când este injectat în paraventricul nucleu. Acest lucru poate fi explicat printr-o mai mare afinitate de apomorfinei asupra receptorilor D4 în comparație cu cea a agonistilor receptorilor D4 testați, sau în mod alternativ, agoniști ai receptorului D4 pot acționa ca agoniști parțiali ai receptorului D4 sau activarea concomitentă a diferitelor subtipuri de receptori de dopamină de apomorfina poate produce o activare mai mare a neuronilor oxitocinergici care mediază erecția penisului, decât activarea prin agoniști ai receptorilor D2 numai subtipului receptorului D4.
Interacțiunile dintre receptorii dopaminergici D1 și D2 au fost deja descrise în controlul comportamentului sexual la nivelul zonei preoptice mediale (vezi Hull și colab., 1989). În cazul în care se va confirma incapacitatea agoniștilor selectivi ai receptorilor D2 de a induce erecția peniană (Hsieh și colab., 2004) (vezi dar Depoortère și colab., 2009), de exemplu chiar și după injectarea acestor compuși în nucleul paraventricular, ar trebui analizat în detaliu un rol major al receptorilor D3 singuri sau împreună cu cel al receptorilor D4 în activarea neuronilor oxitocinergici care mediază erecția peniană (vezi Baskerville și colab., 2009). Din păcate, agoniștii selectivi ai receptorilor D2 și D3 (de exemplu, care diferă în afinitatea lor pentru aceste două subtipuri de receptori cu cel puțin patru/cinci ordine de mărime in vitro) nu sunt disponibili în prezent. Din acest motiv, sugestia recentă conform căreia receptorii D3 mediază erecția peniană indusă de agoniștii clasici ai receptorilor D2, care se bazează în principal pe capacitatea antagoniștilor putativi ai receptorilor D3, caracterizați în experimente in vitro, de a reduce erecția peniană indusă de agoniștii clasici D2, cum ar fi apomorfina, quinpirolul și pramipexolul, care activează puternic toate subtipurile de receptori dopaminergici D2 (Collins și colab., 2009), trebuie cu siguranță validată cu alte experimente. Această validare este necesară și pentru că în acest studiu nu s-a constatat niciun efect al agoniștilor receptorilor D4 asupra erecției peniene, în contrast izbitor cu rezultatele studiilor citate mai sus, care demonstrează un efect pro-erectil al agoniștilor receptorilor D4. Într-adevăr, nici măcar capacitatea apomorfinei de a induce erecția (și căscatul) peniană la șoarecii cu receptor D4 knockout, cu o potență identică cu cea observată la șoarecii de tip sălbatic cu receptor D4 knockout, și capacitatea antagoniștilor receptorilor D3 de a aboli răspunsul la apomorfină la aceste animale (Collins și colab., 2009) nu pot fi considerate o dovadă definitivă pentru un rol selectiv al subtipului de receptor D3 în erecția peniană indusă de agonistul receptorului D2. În afară de diferențele dintre specii, studiile cu ablație a genei receptorului neurotransmițător/neuropeptid și/sau neurotransmițător/neuropeptid (animale cu receptor neurotransmițător/neuropeptid și/sau neurotransmițător/neuropeptid knockout) au adăugat de obicei și mai multă confuzie și complicații în confirmarea presupusului rol sexual al neurotransmițătorilor și/sau neuropeptidelor și al receptorilor acestora. Mai exact, ablația genei oxitocină produce șoareci cu oxitocină knockout care se împerechează și copulează normal, ca și cum oxitocina nu ar fi necesară pentru împerechere și copulație. De asemenea, șoarecii femele homozigoți cu deficit de oxitocină prezintă împerechere și fătare normale, deși cu o afectare semnificativă a eliberării laptelui (Nishimori și colab., 1996; Young și colab., 1996). Ablația genei care codifică sintaza neuronală a oxidului nitric produce, de asemenea, șoareci cu deficit de sintază a oxidului nitric care se împerechează și copulează normal (Huang și colab., 1993). Acest lucru se întâmplă în ciuda faptului că sintaza oxidului nitric produce oxid nitric, care este unul dintre principalii mediatori fiziologici ai erecției peniene la nivel penian (Burnett și colab., 1992; Rajfer și colab., 1992) și la nivel central, în nucleul paraventricular al hipotalamusului (Argiolas, 1994; Benelli și colab., 1995; Melis și colab., 1998). Totuși, aceste descoperiri indică probabil o caracteristică importantă a fiziologiei reproductive, și anume redundanța sistemelor implicate în controlul acesteia la nivel central și periferic.
O astfel de redundanță are cu siguranță o origine evolutivă, deoarece garantează transmiterea genelor la următoarea generație pentru supraviețuirea speciei. Prin urmare, faptul că ablația genei receptorului D4 nu modifică efectul pro-erectil al apomorfinei sugerează că receptorii D4, precum oxitocina și oxidul nitric, sunt doar câțiva dintre mediatorii care acționează în sistemele care controlează funcția erectilă, mai degrabă decât să sugereze că acești receptori nu au niciun rol în controlul erecției peniene și al comportamentului sexual. Eșecul agoniștilor D4 de a induce erecția peniană atunci când sunt administrați sistemic la șobolani masculi din diferite tulpini a fost raportat recent de un alt studiu (Depoortère și colab., 2009). Cu toate acestea, spre deosebire de lucrările lui Collins și colab. (2009) și, pentru a face imaginea rolului diferitelor subtipuri de receptori D2 în controlul erecției peniene și mai derutantă, acest studiu arată, de asemenea, că antagoniștii selectivi ai receptorilor D3 administrați sistemic nu au reușit să reducă erecția peniană indusă de apomorfină la șobolanii masculi din tulpina mai sensibilă la efectul pro-erectil al apomorfinei, în timp ce răspunsul sexual (și căscatul) a fost antagonizat de antagonistul selectiv D2 L-741,626 (3-[[4-(4-clorofenil)-4-hidroxipiperidin-1-il]metil-1H-indol), ceea ce i-a determinat pe autori să sugereze că receptorii D2, mai degrabă decât receptorii D3 și D4, sunt cei care joacă un rol major în erecția peniană indusă de agoniștii D2 (Depoortère et al., 2009). În cele din urmă, nu poate fi complet exclusă posibilitatea ca efectul excitator al agoniștilor receptorilor dopaminergici asupra neuronilor oxitocinergici care mediază erecția peniană, cel puțin parțial, să fie indirect mai degrabă decât direct, de exemplu, mediat sau influențat de modificări ale activității altor neurotransmițători - neuropeptide capabile să moduleze activitatea neuronilor oxitocinergici din nucleul paraventricular.
3.2. Interacțiunea acidului glutamic-oxitocină în nucleul paraventricular
Nucleul paraventricular al hipotalamusului este foarte bogat în sinapse care conțin un aminoacid excitator ca neurotransmițător (de exemplu, acid glutamic și acid aspartic ) (Van Den Pol, 1991). Aminoacizii excitatori din acest nucleu sunt implicați în numeroase funcții, inclusiv erecția peniană și comportamentul sexual (Roeling et al., 1991; Melis et al., 1994b, 2000, 2004b). În consecință, s-a constatat că acidul N-metil-d-aspartic (NMDA), un agonist selectiv al subtipului receptorului NMDA, dar nu și acidul (±)-_-amino-3-hidroxi-5-metil-izoxazol-4-propionic (AMPA), un agonist selectiv al subtipului receptorului AMPA, sau acidul (±)-trans(1)-amino-1,3-ciclopentan dicarboxilic (ACPD), un agonist selectiv al subtipului receptorului metabotropic, este capabil să inducă erecția peniană atunci când este injectat în nucleul paraventricular al șobolanilor cu mișcare liberă (Melis și colab., 1994b). Efectul pro-erectil al 948 MR Melis, A. Argiolas / Neuroscience and Biobehavioral Reviews 35 (2011) 939-955 NMDA a fost prevenit de (+)MK-801, un antagonist necompetitiv al receptorilor NMDA (Woodruff et al., 1987), injectat în nucleul paraventricular (Melis et al., 1994b). În conformitate cu aceste rezultate, în studiile de telemetrie care au vizat monitorizarea presiunii intracavernoase, NMDA s-a dovedit mult mai activ decât agoniștii altor subtipuri de receptori de aminoacizi excitatori atunci când a fost injectat în nucleul paraventricular în creșterea presiunii intracavernoase la șobolani masculi treji sau anesteziați (Zahran et al., 2000; Chen și Chang, 2003).
Așa cum s-a sugerat mai sus pentru oxitocină și dopamină, este probabil ca receptorii NMDA care mediază erecția peniană să fie localizați în corpurile celulare ale neuronilor oxitocinergici, deoarece terminațiile nervoase ale aminoacizilor excitatori lovesc corpurile celulare oxitocinergice din nucleul paraventricular (Van Den Pol, 1991). În analogie cu ceea ce s-a constatat în cazul agoniștilor receptorilor dopaminergici, efectul pro-erectil al NMDA este aparent mediat de activarea neurotransmisiei oxitocinergice, fiind abolit de antagonistul oxitocinei d(CH2)5Tyr(Me)2-Orn8-vasotocină administrat icv, dar nu în nucleul paraventricular (vezi Argiolas și Melis, 1995, 2004, 2005 și referințele aferente). În mod similar, activarea neurotransmisiei oxitocinergice indusă de NMDA este, de asemenea, secundară activării oxidului nitric-sintazei, deoarece erecția peniană indusă de NMDA este prevenită de inhibitorii oxidului nitric-sintazei (N-Nitro-N-metil-arginină metil ester și N-metil-tio-l-citrulină) administrați în nucleul paraventricular, iar NMDA injectat în nucleul paraventricular în doze care induc erecția peniană crește producția de oxid nitric în nucleul hipotalamic (vezi Argiolas și Melis, 1995, 2004, 2005 și referințele aferente). În ceea ce privește agoniștii receptorilor dopaminergici, activarea oxido-sintetazei nitrice indusă de NMDA poate fi, de asemenea, secundară unui influx crescut de Ca2+ în corpurile celulare oxitocinergice prin intermediul receptorilor NMDA cuplați cu canale de Ca2+, așa cum se arată în mai multe preparate neuronale (pentru o analiză, vezi Snyder, 1992; Southam și Garthwaite, 1993; Schuman și Madison, 1994 și referințele aferente). Oxidul nitric, la rândul său, activează neurotransmisia oxitocinergică (vezi mai sus). Originea proiecțiilor glutamatergice care activează neuronii oxitocinergici paraventriculari care mediază erecția peniană este necunoscută, deși unele dovezi neuroanatomice și electrofiziologice sugerează că acestea ar putea proveni, cel puțin parțial, din hipocampus (Saphier și Feldman, 1987; Chen și colab., 1992). Deși sunt necesare studii suplimentare pentru a caracteriza mai bine originea proiecțiilor glutamatergice către nucleul paraventricular, implicarea acidului glutamic în nucleul paraventricular în controlul erecției penisului și al comportamentului sexual este clar susținută de studiile de microdializă. În consecință, concentrațiile extracelulare de acid glutamic și acid aspartic au fost crescute în dializatul obținut din nucleul paraventricular al șobolanilor masculi, care au prezentat erecții fără contact atunci când au fost puși în prezența unor femele de șobolan receptive, amorsate cu estrogen + progesteron, inaccesibile (Melis și colab., 2004b), erecții peniene care sunt, de asemenea, mediate de activarea transmisiei oxitocinergice centrale (Melis și colab., 1999a,b). Astfel de creșteri au fost constatate chiar mai mari atunci când a fost permisă copulația cu femela receptivă (Melis și colab., 2004a). În conformitate cu ipoteza că o activitate crescută a aminoacizilor excitatori are loc în nucleul paraventricular în timpul erecției și copulației peniene, atât erecțiile fără contact, cât și comportamentul copulator (în timpul căruia au loc erecții peniene în copulă) sunt reduse prin blocarea receptorilor NMDA din nucleul paraventricular, iar această reducere este urmată de o scădere a creșterii producției de oxid nitric care are loc în acest nucleu hipotalamic în aceste contexte fiziologice (Melis și colab., 2000). O creștere a concentrației de acid glutamic extracelular, secundară unei eliberări scăzute de GABA din terminațiile nervoase GABAergice care afectează sinapsele aminoacidergice excitatorii juxtapuse corpurilor celulare oxitocinergice, a fost constatată și în nucleul paraventricular după blocarea receptorilor canabinoizi CB1 de către antagonistul CB1 SR 141761A, administrat în ventriculii laterali sau direct în nucleul paraventricular în doze care induc erecția peniană (vezi Succu și colab., 2006; Castelli și colab., 2007). O astfel de creștere a dus la activarea oxidului nitric-sintetazei în corpurile celulare ale neuronilor oxitocinergici, crescând producția de oxid nitric. La rândul său, oxidul nitric activează neuronii oxitocinergici care mediază erecția peniană, așa cum s-a descris mai sus. În conformitate cu acest mecanism, erecția peniană indusă de SR 141761A a fost redusă prin blocarea receptorilor NMDA și prin inhibitorii oxidului nitric-sintetazei, dar nu prin blocarea receptorilor de dopamină sau oxitocină din nucleul paraventricular, în timp ce a fost prevenită prin blocarea receptorilor centrali de oxitocină de către antagoniștii receptorilor de oxitocină administrați icv (Melis et al., 2004a, 2006a).
3.3. Interacțiunea de oxitocină-dopamină în zona tegmentală ventrală
Oxitocina induce erecția penisului când este injectată în zona caudală a zonei tegmentale ventrale într-o manieră dependentă de doză(Melis și colab., 2007). Cea mai mică doză activă injectată unilateral a fost 20 ng, în timp ce cea mai mare doză testată a fost 100 ng. Efectul oxitocinei este mediat de activarea receptorilor oxitocinergici, deoarece răspunsul sexual este eliminat prin injectarea prealabilă a antagonistului de oxitocină d (CH2) 5Tyr (Me) 2-Orn8-vasotocină în zona tegmentală ventrală caudală. Acești receptori sunt localizați în corpurile celulare ale neuronilor dopaminergici, care se proiectează în principal la coaja nucleului accumbens. În consecință, studiile de imunofluorescență dublă (1) arată că, în zona tegmentală ventrală caudală, fibrele oxitocinergice sunt în strânsă legătură cu corpurile celulare ale neuronilor dopaminergici, majoritatea cărora au fost marcate pozitiv pentru tirozină-hidroxilază și conținând anterior markerul retrograd Fluorogold injectat în coaja nucleului accumbens (Melis și colab., 2007) și (2) zona de tegmentare ventrală ventriculară indusă de oxitocină provocată concomitent cu o creștere a concentrației de dopamină extracelulară în dializatul obținut din coaja nucleul accumbens (Melis și colab., 2007). Erecția penitului indusă de oxitocină are loc, de asemenea, concomitent cu o creștere a producției de oxid nitric în zona tegmentală ventrală, fiind ambele răspunsuri antagonizate nu numai de d (CH2) 5Tyr (Me) 2-Orn8-vasotocină și de inhibitorul sintazei oxidului de azot S- metil-tio-1-citrulină, dar și de _-conotoxină, un blocant al canalelor dependente de tensiune Ca2 + și de oxadiazol 1-1,2,4 [4,3-a] chinoxalin-1- ciclaza, toate date în zona tegmentală ventrală caudală înainte de oxitocină (Succu și colab., 2008). Deoarece multe dintre corpurile de celule dopaminergice marcate cu Fluorogold, contactate cu fibre oxitocinergice, găsite a fi pozitive pentru hidroxilaza tirozinei în zona tegmentală ventrală caudală, s-au marcat pozitiv și pentru oxidază-sintetază și guanilat ciclază (Succu și colab., 2008) - erecția penisului indusă poate fi mediată de următorul mecanism. Activarea receptorilor oxitocinergici în corpurile celulelor dopaminergice de către peptidă mărește influxul de Ca2 + în interiorul corpurilor celulare ale neuronilor dopaminergici. Aceasta activează oxidul nitric-sintază, o enzimă dependentă de Ca2 + -calmodulină, mărind astfel producția de oxid nitric. Oxidul de azot, la rândul său, activează guilalat ciclaza, conducând la o concentrație crescută de GMP ciclică. Cyclic GMP activează neuronii dopaminergici care se proiectează la nucleul accumbens. Rolul GMP ciclic în erecția penisului indus de oxitocină injectată în zona tegmentală ventrală caudală este de asemenea susținută de capacitatea GMP-ului 8-bromociclic, un analog activ al fosfodiesterazei analog al GMP ciclic, de a induce erecția penisului atunci când este injectat în zona de tegmentare ventrală caudală și pentru a crește dopamina extracelulară în dializa de la nucleul accumbens (Succu și colab., 2008, Melis și colab., 2009a). Aceasta este în contradicție cu mecanismul prin care oxidul nitric activează neuronii oxitocinergici în nucleul paraventricular, fiind incapabil să inducă erecția penisului atunci când este injectat în acest nucleu (Melis și Argiolas, 8b) (Fig. 2). Rolul dopaminei eliberate în nucleul accumbens în erecția peniană indusă de oxitocină injectată în zona tegmentală ventrală caudală este susținut de capacitatea haloperidolului, un puternic antagonist al receptorilor dopaminergici injectat în nucleul accumbens, de a reduce răspunsul la oxitocină (Melis și colab., 2007).În ceea ce privește căile neuronale activate de dopamină în nucleul accumbens care conduc la erecția penisului, acestea sunt încă necunoscute. Cu toate acestea, datele disponibile sugerează că aceste căi activează neurotransmisia dopaminei în nucleul paraventricular al hipotalamusului. În consecință, erecția penisului indusă de oxitocină are loc concomitent cu o creștere a dopaminei extracelulare nu numai în nucleu accumbens, dar și în nucleul paraventricular și este antagonizat de către antagonistul receptorului de dopamină haloperidol injectat în nucleul paraventricular (Melis și colab., 2007). Aîmpreună, aceste rezultate susțin ideea că neuronii oxitocinergici originari din nucleul paraventricular și care se proiectează în zona tegmentală ventrală caudală atunci când se eliberează oxitocină în această zonă, activând astfel un sistem de semnalizare GMP ciclic, care la rândul său activează neuronii mezolimbici dopaminergici (Melis și colab., 2007, 2009a, Succu și colab., 2008). Dopamina eliberată în nucleul accumbens activează la rândul său căile neuronale care duc la activarea neuronilor dopaminergici incerto-hipotalamici, care stimulează neuronii oxitocinergici paraventriculare care se proiectează în măduva spinării care mediază erecția penisului. În același timp, dopamina eliberată în nucleul paraventricular ar putea de asemenea să activeze neuronii oxitocinergici care se proiectează în zone extra-hipotalamice ale creierului, cum ar fi zona tegmentală ventrală, hipocampul, amigdala și probabil alte zone ale creierului.
Așa cum s-a reamintit mai sus, în conformitate cu această ipoteză, apomorfina injectată în nucleul paraventricular într-o doză care induce erecția peniană crește, de asemenea, concentrația extracelulară de dopamină în nucleul accumbens, efect redus de antagonistul receptorului de oxitocină d(CH2)5Tyr(Me)2-Orn8-vasotocină injectată în zona tegmentală ventrală (Succu et al., 2007; Melis et al., 2009a). Împreună, căile neuronale de mai sus ar putea constitui un circuit neuronal ipotetic care implică dopamină, oxitocină și alți neurotransmițători (de exemplu, acid glutamic, vezi mai jos) influențând nu numai performanța sexuală, ci și motivația sexuală și recompensarea sexuală (vezi Secțiunea 4).
3.4. Interacțiunea acido-glutamic acid în subiculul ventral al hipocampului
Oxitocina induce erecția penisului când este injectată în ventricul, dar nu în subiculul dorsal, într-o manieră dependentă de doză (Melis și colab., 2009b). Raspunsul sexual este mediat de stimularea receptorilor de oxitocina, fiind eliminat prin injectarea prealabila a vasotocinei d (CH2) 5Tyr (Me) 2-Orn8 administrata in acelasi loc de oxitocina, asa cum se gaseste in alte zone ale creierului (vezi mai sus) . În ceea ce privește localizarea acestor receptori, datele disponibile sugerează că acestea sunt localizate în corpurile celulare ale neuronilor bogați în oxid de azot-sintază.
Prin urmare, studiile de microdializă arată că erecția peniană indusă de oxitocină are loc concomitent cu o creștere a producției de oxid nitric în subiculul ventral, iar această creștere este abolită nu numai prin injectarea prealabilă a inhibitorului de oxid nitric sintază S-metil-tio-l-citrulinei și de hemoglobina, un agent de eliminare a oxidului nitric, ci și de d(CH2)5Tyr(Me)2-Orn8-vasotocină, toate administrate în același loc cu oxitocină în doze care antagonizează erecția peniană (Melis și colab., 2010). Mai important, erecția peniană indusă de oxitocină are loc, de asemenea, concomitent cu o creștere a concentrației de acid glutamic extracelular în subiculul ventral, care este doar parțial antagonizat de antagonistul necompetitiv al receptorilor NMDA (+)MK-801 administrat în subiculul ventral (Melis și colab., 2010). Împreună, aceste rezultate sugerează că oxidul nitric nou format, acționând ca un mesager intercelular, activează neurotransmisia acidului glutamic, ducând la erecția peniană, posibil prin proiecții neuronale eferente din subiculul ventral către zone cerebrale extra-hipocampice. În conformitate cu această ipoteză, NMDA injectat în subiculul ventral induce erecția peniană într-un mod dependent de doză, iar acest efect este antagonizat complet de injectarea anterioară în același loc a (+)MK-801, dar nu și de S-metil-tio-l-citrulină, hemoglobină sau d(CH2)5Tyr(Me)2-Orn8-vasotocină (Melis și colab., 2010). În ceea ce privește căile neuronale eferente care se proiectează către zone cerebrale extra-hipocampice activate de aminoacizii excitatori (adică acidul glutamic) din subiculul ventral, este probabil ca acestea să fie glutamatergice, la fel ca majoritatea proiecțiilor eferente hipocampice. În prezent, s-ar putea sugera doar că aceste proiecții modulează activitatea neuronilor dopaminergici mezolimbici, care, la rândul lor, modulează activitatea neuronilor dopaminergici incerto-hipotalamici din nucleul paraventricular, ducând la activarea neuronilor oxitocinergici care mediază erecția peniană, așa cum s-a discutat deja (vezi mai sus).
În consecință, erecția peniană indusă de oxitocina din subiculul ventral apare concomitent cu o creștere a concentrației de dopamină extracelulară în învelișul nucleului accumbens, iar această creștere, la fel ca erecția peniană, este abolită de d(CH2)5Tyr(Me)2-Orn8-vasotocină administrată în subiculul ventral înainte de oxitocină (Melis și colab., 2009b). Mai mult, întrucât erecția peniană indusă de oxitocină în subiculul ventral este, de asemenea, redusă de (+)MK-801 injectat în zona tegmentală ventrală, dar nu și în nucleul accumbens (Melis et al., 2009b) și apare concomitent cu o creștere a acidului glutamic extracelular în zona tegmentală ventrală, dar nu și în nucleul accumbens, ambele răspunsuri fiind abolite de d(CH2)5Tyr(Me)-Orn8-vasotocină, injectată în subiculul ventral înainte de oxitocină (vezi Fig. 3), este probabil ca activarea neuronilor dopaminergici mezolimbici să fie secundară unei neurotransmisii glutamatergice crescute în zona tegmentală ventrală. Acest lucru sugerează că există o interacțiune acid glutamic-dopamină care controlează erecția peniană în zona tegmentală ventrală. Sunt necesare studii suplimentare pentru a stabili dacă căile glutametergice eferente pro-erectile de la subicul la zona tegmentală ventrală sunt directe sau indirecte, adică prin cortexul prefrontal sau alte zone ale creierului (vezi Melis și colab., 2009b și referințele aferente). Întrucât nucleul paraventricular primește, de asemenea, proiecții glutamatergice din hipocampus (vezi mai sus și Saphier și Feldman, 1987), iar acidul glutamic activează neuronii oxitocinergici paraventriculari, inclusiv cei care se proiectează în aria tegmentală ventrală (vezi Argiolas și Melis, 2005 și referințele aferente), iar oxitocina din aria tegmentală ventrală induce erecția peniană și crește activitatea neuronilor dopaminergici mezolimbici (vezi mai sus), este tentant să speculăm că neuronii oxitocinergici paraventriculari ar putea fi, de asemenea, implicați, cel puțin parțial, în activarea neuronilor dopaminergici mezolimbici prin injectarea oxitocinei în subiculul ventral (vezi Secțiunea 4).
4. Concluzii finale
Studiile analizate mai sus confirmă și extind descoperirile timpurii care arată că, la șobolanii masculi, oxitocina joacă un rol cheie în controlul central al erecției peniene la nivelul nucleului paraventricular al hipotalamusului și al măduvei spinării. În special, cele mai recente studii arată că oxitocina influențează erecția peniană și prin acțiunea asupra altor zone ale creierului, și anume zona tegmentală ventrală, subiculul ventral și nucleul cortical posteromedial al amigdalei.
La nivel paraventricular, cea mai importantă descoperire nouă este probabil descoperirea expresiei tuturor receptorilor dopaminergici din familia D2 (D2, D3 și D4) în corpurile celulare ale neuronilor oxitocinergici din nucleul paraventricular (și în nucleul supraoptic și zona preoptică medială) (Baskerville și Douglas, 2008; Baskerville et al., 2009). Aceasta oferă un sprijin neuroanatomic puternic ipotezei că dopamina și agoniștii receptorilor dopaminergici pot activa direct neuronii oxitocinergici implicați în funcția erectilă și proiectează nu numai către măduva spinării, ci și către zonele cerebrale extra-hipotalamice . În acest sens, este importantă și descoperirea faptului că creșterea presiunii intracavernoase indusă de agoniștii receptorilor dopaminergici este redusă prin blocarea receptorilor oxitocinergici din măduva spinării lombo-sacrală (Baskerville et al., 2009). Într-adevăr, deși astfel de dovezi au fost obținute la șobolani masculi anesteziați, descoperirea confirmă activarea unei căi descendente oxitocinergice paraventriculo-spinale implicate în erecția peniană indusă de agonistul receptorilor dopaminergici. Cu toate acestea, încă nu s-a stabilit dacă erecția peniană indusă de stimularea receptorilor dopaminergici prezenți în corpurile celulare oxitocinergice este secundară activării unui subtip specific de receptor dopaminergic din familia D2 (D2, D3 sau D4) sau dacă aceste subtipuri de receptori cooperează la modularea răspunsului erectil, posibil în moduri diferite, în funcție de contextul în care are loc erecția peniană (vezi Moreland și colab., 2004; Enguehard-Gueiffier și colab., 2006; Melis și colab., 2006a,b; Löber și colab., 2009; Collins și colab., 2009; Depoortère și colab., 2009; Baskerville și colab., 2009).
O altă constatare importantă constă în faptul că oxitocina induce erecția penisului atunci când este injectată nu numai în nucleul paraventricular sau în câmpul CA1 al hipocampului, dar și în zona tegmentală ventrală, subiculul ventral și nucleul cortical de bază al amigdalei. Aceste zone ale creierului nu au fost testate în studiile anterioare, arătând că oxitocina a crescut episoadele spontane de erecție a penisului la șobolanii masculi, deși primesc proiecții oxytocinergice lumbo-sacrale ale măduvei spinării din nucleul paraventricular. Oxytocina a fost într-adevăr descoperită ca fiind capabilă de creșterea episoadelor spontane de erecție a penisului care apar la șobolanii masculi adulți, în absența oricăror stimuli sexuali, cum ar fi cei care provin din prezența unui șobolan femelă ovariectomizată receptiv sau inaccesibil manipularea organelor genitale, wheninjected în nucleul paraventricular și câmpul CA1 hipocampusului, dar nu și în subiculum dorsal, septul lateral, nucleul caudat, zona mediana preoptic, nucleul ventromedial si nucleul supraoptic (Melis et al. , 1986). În toate aceste studii, erecția penisului a fost de obicei contorizată atunci când penisul a ieșit din teaca penisului de către un observator care nu cunoștea tratamentele date direct în timpul experimentului sau mai târziu prin observarea experimentului înregistrat pe o casetă video cu un aparat de cameră video. Fiecare episod de erecție a penisului durează min. 0.5-1 min și este însoțit, de obicei, de îngrijirea penisului și / sau de flexiile șoldului. Nici un experiment nu se face de obicei la acești șobolani pentru a stabili efectul experienței sexuale, a vârstei sau dacă acești șobolani pot fi împărțiți la cei cu răspuns scăzut sau înalt la efectul pro-erectil al oxitocinei injectat în diferitele zone ale creierului. Acest lucru se aplică și în majoritatea studiilor privind efectul proeretil al altor neuropeptide și medicamente care cresc episoadele spontane de erecție a penisului, incluzând agoniști ai dopaminei, aminoacizi excitatori, peptide ACTH-MSH, hexarelin și VGF. Cu toate acestea, efectul pro-erectil al acestor compuși a fost confirmat în mod repetat prin metode de telemetrie care determină apariția erecției penisului prin creșterea presiunii intracavernoase care apare spontan sau după administrarea acestor compuși prin căi diferite, adică sistemic, intracerebroventricular sau direct în nuclee specifice ale creierului, după implantarea unui microtransductor de presiune direct în corpul cavernos (a se vedea Bernabè et al., 1999). În zona tegmentală ventrală, subiculul ventral și nucleul posteromedial al amigdalei, de asemenea, oxitocina induce erecția penisului acționând asupra receptorilor oxitocinergici. Aceasta duce la activarea neuronilor dopaminergici mezolimbici originari din zona tegmentală ventrală și care se proiectează în cochilia nucleului accumbens, măsurată prin creșterea concentrației de dopamină extracelulară în dializatul obținut din carcasa nucleului accumbens și prin reducerea răspunsului erectil indus de peptida injectată în aceste zone extra-hipotalamice, găsită după blocarea receptorilor dopaminergici în nucleul accumbens (vezi mai jos). În ceea ce privește mecanismele activate prin stimularea receptorilor oxitocinergici în aceste zone ale creierului, care duc la activarea neuronilor dopaminergici mezolimbici și la erecția penisului, cele mai bine clarificate sunt cele care apar în zona tegmentală ventrală caudală. Într-adevăr, aici rezultatele farmacologice și imuno-fluorescente arată că încheieturile nervoase ale oxitocinei afectează corpurile celulare ale neuronilor dopaminergici care se proiectează în cochilia nucleului accumbens (Melis și colab., 2007, 2009a, Succu și colab., 2008). Mulți dintre acești neuroni sunt bogați în sintază de oxid de azot și în guanilat ciclază. Stimularea receptorilor oxitocinergici în corpurile celulare ale acestor neuroni dopaminergici determină activarea sintazei de oxid nitric care conduce la o producție crescută de oxid nitric. Oxidul de azot, la rândul său, activează guilalat ciclaza, crescând astfel concentrația de GMP ciclic, care conduce la activarea neuronilor dopaminergici mezolimbici și la eliberarea de dopamină în nucleul accumbens, măsurată prin creșterea dopaminei extracelulare în dializat din nucleul accumbens obținut prin microdializa intra cerebrală (Succu și colab., 2008 ). Dopamina eliberată în nucleul accumbens la rândul său activează căile neuronale care duc la erecția penisului. Acest lucru este susținut de capacitatea antagoniștilor receptorilor de dopamină haloperidol și / sau cis-flupentixol injectați în nucleul accumbens pentru a reduce erecția penilei indusă de oxitocină ventriculară ventriculară (Succu și colab., 2008). Una dintre căile pro-erectile pare să activeze neuronii dopaminergici incerto-hipotalamici, în special cei care se proiectează la organismele celulare ale neuronilor oxitocinergici paraventriculare. Într-adevăr, oxitocina injectată în zona tegmentală ventrală caudală crește dopamina extracelulară nu numai în nucleul accumbens, ci și în nucleul paraventricular, iar blocarea receptorilor dopaminergici în nucleul paraventricular reduce erecția penilei indusă de oxitocină indusă de zona tegmentală ventriculară (Succu și colab. , 2007, 2008, Melis și colab., 2007, 2009a). Existența acestor nucleu accumbens dopamină-paraventriculară dopaminergie-paraventriculară oxitocină-ventral ventriculară tectonală legături de oxitocină-dopamină este de asemenea sugerată de capacitatea unei doze pro-erectile de apomorfină și a agonistului receptorului D4 PD 168077 injectat în nucleul paraventricular pentru a crește dopamina extracelulară în coaja nucleului accumbens (Succu și colab., 2007), răspuns care este eliminată de d (CH2) 5Tyr (Me) -Orn8-vasotocin administrat în zona tegmentală ventrală (Melis și colab., 2009a, a se vedea și mai jos). Cu toate acestea, sunt necesare lucrări suplimentare pentru identificarea căilor neuronale care leagă nucleul accumbens de sistemul dopaminergic incerto-hipotalamic.
Mecanismul prin care oxitocina induce erecția penisului și activează neuronii dopaminergici mezolimbici atunci când este injectat în subiculul ventral sau în nucleul posteromedial al amigdalei este doar parțial înțeles în prezent. În aceste domenii, de asemenea, oxitocina activează propriile receptori care conduc la activarea oxidului de azot-sintază, crescând astfel producția de oxid nitric. Oxidul de azot, la rândul său, activează proiecții eferente necunoscute, care aparent cresc neurotransmisia glutamatergică în zona tegmentală ventrală. Acidul glutamic stimulează apoi neuronii mesolimbici dopaminergici care conduc la erecția penisului.Această ipoteză este susținută în principal de capacitatea oxitocinei injectată în subiculul ventral pentru a crește acidul glutamic extracelular în zona tegmentală ventrală (Fig. 3) și a antagonistului (+) MK-801 al receptorului NMDA necompetitiv injectat în zona tegmentală ventrală, dar nu în nucleul accumbens, pentru a reduce erecția penisului indusă de oxitocină injectată fie în subiculul ventral, fie în nucleul posterior din amigdala (Melis și colab., 2009b). În prezent, sunt disponibile mai multe detalii pentru erecția penicilulară indusă de subtipul ventricular oxitocină. Aici erecția penicilulară indusă de oxitocină pare secundară activării receptorilor oxitocinergici localizați în corpurile celulare ale neuronilor care conțin oxid de azot-sintază. Acest lucru determină o creștere a producției de oxid nitric, care activează neurotransmisia glutamatergică, acționând ca un mesager intercelular cu un mecanism similar celui descris pentru potențarea pe termen lung (vezi Snyder, 1992, Southam și Garthwaite, 1993, Schuman și Madison, 2004) . În conformitate cu această ipoteză, erecția penisului indusă de oxitocină are loc concomitent cu o creștere a acidului glutamic extracelular în dializă din subculumul ventral și stimularea receptorilor de aminoacizi excitatori în subculumul ventral prin NMDA, induce erecția penisului. Acidul glutamic, la rândul său, activează proiecții eterogene neurale, care duc la activarea neuronilor mezolimbici dopaminergici în zona tegmentală ventrală, așa cum s-a raportat mai sus. Dacă aceste mecanisme funcționează și în nucleul posteromedial al amigdalei, nu este cunoscut în prezent. Mai mult, sunt necesare studii suplimentare pentru a dovedi că terminațiile și receptorii oxitocinergici (1) din subcapulul ventral și în nucleul postemedial al amigdalei sunt localizați în corpurile celulare ale neuronilor care conțin oxid de azot-sintază (2) dacă acești neuroni sunt în cele din urmă sub controlul sinapsei de aminoacizi excitatori (glutamatergice) și (3) pentru a identifica sistemul de semnalizare activat de oxidul de azot. În acest sens, este demn de remarcat faptul că abilitatea oxitocinei de a crește activitatea de oxid de azot-sintază în corpurile celulare ale neuronilor dopaminergici din zona tegmentală ventrală caudală și a neuronilor încă necunoscuți în subculumul ventral și nucleul posteromedial al amigdalei, reamintește capacitatea oxitocinei de a activa sinteza oxidului nitric în corpurile celulare ale neuronilor oxitocinergici din nucleul paraventricular (Melis și colab., 1997). Cu toate acestea, în timp ce în zona tegmentală ventrală creșterea producției de oxid nitric în corpurile celulare ale neuronilor dopaminergici duce la activarea acestor neuroni prin activarea guanilate ciclazei și creșterea GMP ciclică, acest lucru nu se întâmplă în nucleul paraventricular. În consecință, GMP 8-bromociclic injectat în nucleul paraventricular nu induce erecția penisului, în timp ce acesta se produce atunci când este injectat în zona tegmentală ventrală. O altă cale de semnalizare diferită de sistemul GMP oxidic nitricic este apoi implicată la nivelul paraventricular în activarea neuronilor oxitocinergici care mediază erecția penisului de oxidul nitric endogen și / sau exogen (Melis și Argiolas, 1995b, Melis și colab., 1997) . 1). Pe de altă parte, GMP ciclic în zona tegmentală ventrală pare să joace, de asemenea, un rol-cheie în activarea neuronilor dopaminergici mezolimbici și în creșterea dopaminei extracelulare care apare în dializatul obținut din coaja nucleului accumbens al șobolanilor masculi selectate pentru a arăta sau a nu prezenta erecții necontacte ale penisului atunci când au fost prezentate în prezența unui șobolan femelă receptiv ovariectomizat inactiv (cu estrogen + progesteron tratat). În aceste condiții experimentale, la șobolanii masculi care prezintă erecții penisului necontact, se constată o creștere a concentrației de dopamină extracelulară așa cum se aștepta și această creștere este în continuare crescută, deși numai modest, de către inhibitorii de fosfodiesterază administrați în zona tegmentală ventrală caudală al., 2009). În schimb, la șobolanii masculi care nu prezintă erecții fără contact, la care nu se constată o creștere apreciabilă a dopaminei extracelulare în nucleul accumbens, concentrația de dopamină extracelulară este semnificativ crescută de inhibitorii de fosfodiesterază administrați în zona tegmentală ventrală caudală și se observă erecții fără contact (Sanna et al., 2009).
Capacitatea oxitocinei injectat in zona ventral tegmental, în subiculum ventral și în nucleul cortical posteromedial al amigdalei, împreună cu cea a agoniștilor dopaminei injectat în nucleul paraventricular, pentru a induce erecția penisului si pentru a activa neuronilor dopaminergici mezolimbice merită unele comentarii . În primul rând, mecanismele similare celor amintite mai sus pot fi operative atunci când erecția penisului are loc în contexte fiziologice, cum ar fi în timpul copulației (în cazul erecțiilor penisului copula) sau în timpul erecțiilor penisului necontact. Aceste erecții sunt erecții penile mediate de feromoni, indistinguizabile de cele induse de medicamente sau de oxitocină, care apar atunci când șobolanii masculi potenți sexual sunt puse în prezența unui șobolan de sex feminin receptiv (ovariectomizat cu estrogen + progesteron primat) și sunt considerați ca un indice sexual excitare (Sachs, 1997, 2007). Într-adevăr, deși aceste rezultate nu demonstrează că oxitocina din aceste domenii joacă un rol în erecția penisului care apare în contexte fiziologice sau după administrarea medicamentului, acestea adaugă o rezistență suplimentară la constatările precoce sugerând că aceste zone ale creierului aparțin acelora în care oxitocina administrată acționează la nivel central nu numai episoadele spontane de erecție a penisului observate după medicamentele pro-erectile, ci și îmbunătățirea comportamentului sexual masculin (și femeie) (vezi Argiolas și Melis, 2004 și referințele din acestea). Prin urmare, creșterea concentrației de oxitocină în hipocampul șobolanilor masculi tratați cu o doză proerectil de apomorfina, un agonist al dopaminei clasic (Melis și colab., 1990) și d (CH2) 5Tyr (Me) -Orn8-vasotocin, care blocheaza oxitocină (Argiolas și colab., 1987a), dar și efectul de facilitare a apomorfinei asupra comportamentului de copulație masculină (Argiolas și colab., 1987b) la șobolani masculi poteni sexuali, în timpul căruia în erecția copula penile apar. d (CH2) 5Tyr (Me) -Orn8-vasotocina este, de asemenea, extrem de potențială în reducerea erecțiilor necontacte la șobolanii masculi sexuali, când este administrat în cantități nanogram în ventriculele laterale, dar nu în PVN (Melis și colab., 1999a).
În al doilea rând, neuronii dopaminergici mezolimbici joacă un rol cheie în proprietățile motivaționale și recompensatoare ale stimulilor naturali de întărire, cum ar fi mâncarea, apa și activitatea sexuală (Fibiger și Phillips, 1988; Wise și Rompre, 1989; Everitt, 1990). În special, se consideră că dopamina eliberată de acești neuroni mediază transpunerea aspectelor motivaționale ale stimulilor naturali în comportamente orientate spre scop, de exemplu în cazul activității sexuale, al căutării unui partener sexual și al actului sexual pentru a obține recompensă și satisfacție (Goto și Grace, 2005). În consecință, concentrația extracelulară de dopamină crește în dializatul din nucleul accumbens al șobolanilor masculi potenți sexual în timpul expunerii la o femelă de șobolan receptivă, inaccesibilă și amorsată cu estrogen + progesteron, iar o astfel de creștere a fost chiar mai mare atunci când șobolanul mascul a fost lăsat să copuleze cu femela receptivă (Pfaus și Everitt, 1995).
În al treilea rând, rezultatele de față susțin ipoteza că un circuit neuronal conectează nucleul paraventricular cu zona tegmentală ventrală direct sau indirect (prin subiculul ventral și / sau nucleul cortical posterior al amigdalei) și nucleul accumbens și de aici prin necunoscut cai din nou la nucleul paraventricular pentru a controla activitatea neuronilor oxitocinergici proeminente la măduva spinării mediază erecția penisului si a neuronilor oxitocinergici proeminente la zona tegmentală ventral, subiculum ventral și nucleul cortical posteromedial al amigdala, modularea în acest fel activitatea neuronilor dopaminergici mesolimbici (Fig. 4). Acest circuit neuronal complex poate juca un rol în integrarea activităților neuronale implicate în controlul aspectelor consumatoare (erectilă-ejaculatoare) și anticipative (motivaționale și pline de satisfacție) ale comportamentului sexual masculin în contexte fiziologice. Într-adevăr, dopamina extracelulară crește în nucleul accumbens (Pfaus și Everitt, 1995) și în nucleul paraventricular al șobolanilor masculi poteni sexuali în timpul expunerii la un șobolan femele receptiv inaccesibil, când apar erecții necontacte și chiar mai mult când se permite copularea, de exemplu, când apar în copula erecțiile penisului (Melis și colab., 2003). Astfel, deși sunt necesare studii suplimentare pentru a clarifica rolul oxitocinei endogene în zona tegmentală ventrală, subiculul ventral și amigdala în timpul erecțiilor necontacte și a comportamentului sexual, poate fi rezonabil să presupunem că acest circuit neuronal ipotetic, contribuind în același timp la aspectele consumatoare ale comportamentului sexual, în același timp, pot activa, de asemenea, sistemul dopaminergic mezolimbic care furnizează un substrat neural pentru a explica proprietățile satisfacatoare ale activității sexuale (Everitt, 1990, Pfaus și Everitt, 1995). În acest sens, este de remarcat faptul că sistemul dopaminergic mesolimbic activat de oxitocină injectat în zona tegmentală ventrală este același activat de medicamente de abuz cum ar fi opiacee, canabinoide, amfetamine, cocaină și alcool (Tanda și colab., 1997) și că oxitocina a fost găsită capabilă să reducă toleranța și dependența de cocaină, morfină, alcool și canabinoizi (Kovacs și colab., 1998, Cui și colab., 2001). În concluzie, se pare că oxitocina eliberată nu numai în zona tegmentală ventrală, dar și în subiculul ventral și nucleul cortexului posterior al amigdalei poate activa neuronii dopaminergici mezolimbici care pot fi implicați în efectele apetitului și recompensării activității sexuale . Activarea neuronilor dopaminergici mezolimbici poate fi directă prin intermediul receptorilor oxitocinergici în corpurile celulare ale neuronilor dopaminergici mezolimbici sau indirect prin activarea neurotransmisiei acidului glutamic în zona tegmentală ventrală.
Dopamina eliberată în cochilia nucleului accumbens modulează în schimb activitatea neuronilor dopaminergici incerto-hipotalamici în nucleul paraventricular, determinând fie erecția penisului (prin activarea neuronilor oxitocinergici care se proiectează în măduva spinării), fie motivația și recompensarea sexuală (prin activarea oxitocinergic neuronii care se proiectează în zona tegmentală ventrală, subiculul ventral sau nucleul cortical de tip posterior al amigdalei). Deoarece dopamina este de asemenea eliberată în nucleul nucleului accumbens și în nucleul paraventricular atunci când erecția penisului are loc în contexte fiziologice (de exemplu, erecțiile și copulația necontacte) (Succu și colab., 2007, Melis și alții, 2003, 2007), este probabil că neuronii centrali oxitocinergici participă la circuite neuronale care mediază o interacțiune între sistemul dopaminergic mezolimbic și inertto-hipotalamic. Aceste circuite neuronale pot juca un rol nu numai în faza consummatorie a comportamentului sexual (de exemplu, erecția și copularea penisului), dar și în motivația sexuală, excitarea sexuală și recompensa sexuală.
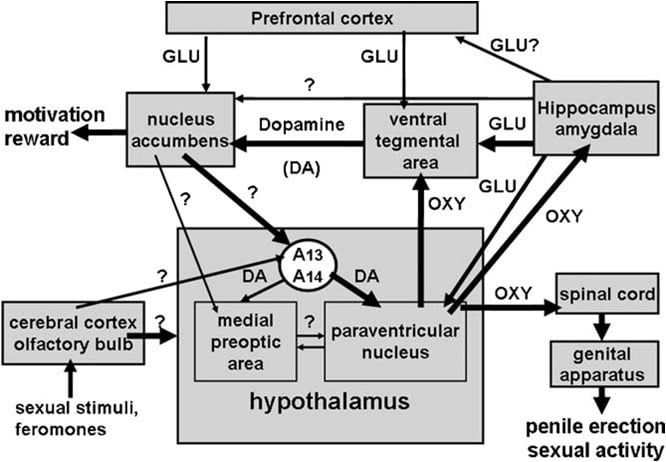
Reprezentare schematică a unui circuit neuronal ipotetic care implică oxitocina și influențează motivația sexuală, recompensarea și performanța sexuală, așa cum sugerează rezultatele acestui capitol și rapoartele anterioare. Neuronii oxitocinergici care își au originea în nucleul paraventricular și se proiectează către măduva spinării atunci când sunt activați, de exemplu, de dopamină și acid glutamic (dar și de alți neurotransmițători și/sau neuropeptide), facilitează erecția peniană și performanța sexuală prin activarea neuronilor oxitocinergici care se proiectează către măduva spinării. Dopamina și acidul glutamic (dar și neurotransmițătorii și neuropeptidele) din nucleul paraventricular activează, de asemenea, neuronii oxitocinergici care se proiectează către zona tegmentală ventrală, activând astfel neuronii dopaminergici mezolimbici care se proiectează către nucleul accumbens, modulând motivația și recompensa sexuală. Dopamina eliberată în nucleul accumbens (NA) activează la rândul ei căi neuronale încă necunoscute, care cresc activitatea neuronilor dopaminergici incerto-hipotalamici (care provin din grupurile A13-A14 ale lui Dahlstrom și Fuxe) acționând, printre alții, asupra neuronilor oxitocinergici, inclusiv a celor care se proiectează spre măduva spinării, ducând la erecția peniană. Acest circuit poate fi activat și prin injectarea de oxitocină nu numai în aria tegmentală ventrală caudală, ci și în subiculul ventral și în amigdală, care primesc, de asemenea, o inervație oxitocinergică din nucleul paraventricular, posibil prin eferența glutamatergică directă sau indirectă către aria tegmentală ventrală, ducând la modularea atât a motivației sexuale, cât și a erecției peniene. În cele din urmă, circuitele menționate mai sus pot fi activate și de stimuli sexuali și feromoni, deoarece dopamina extracelulară și acidul glutamic cresc în nucleul paraventricular (și în zona preoptică medială) în timpul erecțiilor și copulației fără contact mediate de feromoni (pentru referințe adecvate, consultați lista de referințe).
Mulțumiri Această lucrare a fost parțial susținută de un grant acordat de Ministerul italian al Universității și de cercetare pentru AA și MRM
Referinte
Andersson, KE, 2001. Farmacologia erecției penisului. Pharmacol. Rev 53, 417-450. Argiolas, A., 1994. Oxidul nitric este un mediator central al erecției penisului. Neuropharmacologie 33, 1339-1344. Argiolas, A., 1999. Neuropeptide și comportament sexual. Neurosci. Biobehav. Rev 23, 1127-1142. Argiolas, A., Gessa, GL, 1991. Funcțiile centrale ale oxitocinei. Neurosci. Biobehav. Rev 15, 217-231. Argiolas, A., Melis, MR, 1995. Neuromodularea erecției penisului: o prezentare generală a rolului neurotransmițătorilor și neuropeptidelor. Prog. Neurobiol. 47, 235-255. Argiolas, A., Melis, MR, 2004. Rolul oxitocinei și al nucleului paraventricular în comportamentul sexual al mamiferelor masculine. Physiol. Behav. 83, 309-317. Argiolas, A., Melis, MR, 2005. Controlul central al erecției penisului: rolul nucleului paraventricular al hipotalamusului. Prog. Neurobiol. 76, 1-21. Argiolas, A., Collu, M., Gessa, GL, Melis, MR, Serra, G., 1988. Antagonistul de oxitocină d (CH2) 5Tyr (Me) -Orn8-vasotocina antagonizează comportamentul copular masculin la șobolani. E. J. Pharmacol. 149, 389-392. Argiolas, A., Collu, M., D'Aquila, P., Gessa, GL, Melis, MR, Serra, G., 1989. Stimularea apomorfinei comportamentului copulator masculin este prevenită de către antagonistul de oxitocină d (CH2) 5Tyr (Me) -Orn8-vasotocină la șobolani. Pharmacol. Biochem. Behav. 33, 81-83. Argiolas, A., Melis, MR, Gessa, GL, 1985. Intracentricularul oxitocin induce căscatul și erecția penisului la șobolani. E. J. Pharmacol. 117, 395-396. Argiolas, A., Melis, MR, Gessa, GL, 1986. Oxitocina: un inductor extrem de puternic al erecției și căscării penisului la șobolanii masculi. E. J. Pharmacol. 130, 265-272. Argiolas, A., Melis, MR, Mauri, A., Gessa, GL, 1987a. Leziunea nucleului paraventricular previne căderea și erecția penisului indusă de apomorfină și oxitocină, dar nu de ACTH la șobolani. Brain Res. 421, 349-352. Argiolas, A., Melis, MR, Vargiu, L., Mauri, A., Gessa, GL, 1987b. d (CH2) 5Tyr (Me) -Orn8-vasotocina, un antagonist puternic al oxitocinei, antagonizează erecția penisului și căscatul indus de oxitocină și apomorfină, dar nu de ACTH 1-24. E. J. Pharmacol. 134, 221-224. Argiolas, A., Melis, MR, Stancampiano, R., Gessa, GL, 1990. _-Conotoxinul previne erecția penisului indusă de apomorfină și oxitocină și șanțul la șobolanii masculi. Pharmacol. Biochem. Behav. 37, 253-257. Arletti, R., Bertolini, A., 1985. Oxitocina stimulează comportamentul lordoză la șobolanii femele. Neuropeptide 6, 247-255. Arletti, R., Bazzani, C., Castelli, M., Bertolini, A., 1985. Oxitocina îmbunătățește performanța copulară masculină la șobolani. Horm. Behav. 19, 14-20. Arletti, R., Benelli, A., Bertolini, A., 1990. Comportamentul sexual al șobolanilor de sex masculin îmbătrânit este stimulat de oxitocină. E. J. Pharmacol. 179, 377-382. Arletti, R., Calzà, L., Giardino, L., Benelli, A., Cavazzutti, E., Bertolini, A., 1997. Impotența sexuală este asociată cu o producție redusă de oxitocină și o producție crescută de peptide opioide în nucleul paraventricular al hipotalamusului. Neurosci. Lett. 233, 65-68. Bancila, M., Giuliano, F., Rampin, O., Mailly, P., Brisorgueil, MJ, Clas, A., Verge, D., 2002. Dovezi pentru o proiecție directă din nucleul paraventricular al hipotalamusului la presupușii neuroni serotoninergici ai nucleului paragigantocelular implicat în controlul erecției la șobolani. E. J. Neurosci. 16, 1240-1249. Burnett, AL, Lowenstein, CJ, Bredt, DS, Chang, TSK, Snyder, SH, 1992. Oxidul nitric: un mediator fiziologic al erecției penisului. Știință 257, 401-403. Baskerville, TA, Douglas, AJ, 2008. Interacțiunea dintre dopamină și oxitocină în controlul comportamentului sexual. Prog. Brain Res. 170, 277-289. Baskerville, TA, Allard, J., Wayman, C., Douglas, AJ, 2009. Interacțiunea dopamino-oxitocină în erecția penisului. E. J. Neurosci. 30, 2151-2164. Benelli, A., Bertolini, A., Poggioli, R., Cavazzutti, E., Calza, L., Giardino, L., Arletti, R., 1995. Oxidul nitric este implicat în comportamentul sexual masculin al șobolanilor. E. J. Pharmacol. 294, 505-510. Bernabè, J., Rampin, O., Sachs, BD, Giuliano, F., 1999. Tensiunea intracavernoasă în timpul erecției la șobolani: o abordare integrativă bazată pe înregistrarea telemetrică. A.m. J. Physiol. 276, R441-R449. Bitner, RS, Nikkel, AL, Otte, S., Martino, B., Barlow, EH, Bhatia, P., Stewart, AO, Brioni, JD, Decker, Moreland, RB, 2006. Dopamina receptorului D4 de semnalizare în nucleul hipotalamic paraventricular al șobolanului: dovezi ale cuplării naturale care implică inducerea imediată a genei imediate și fosforilarea protein kinazei activate de mitogen. Neuropharmacologie 50, 521-531. Brioni, JD, Moreland, RB, Cowart, M., Hsieh, GC, Stewart, AO, Hedlund, P., Donnelly-Roberts, DL, Nakane, M., Lynch 3rd., J. Kolasa, T. Polakowski , JS, Osinski, MA, Marsh, K., Andersson, KE, Sullivan, JP, 2004. Activarea receptorilor de dopamină D4 de către ABT-724 induce erecția penisului la șobolani. Proc. Natl. Acad. Sci. Statele Unite ale Americii 101, 6758-6763. Buijs, RM, 1978. Vasele de vasopresină și oxitocină intra- și extra-hipotalamică la șobolan. Cell Tissue Res. 192, 423-435. Buijs, RM, Geffard, M., Piscină, CW, Hoorneman, EMD, 1984. Inervația dopaminergică a nucleului supraoptic și paraventricular. Un studiu microscopic de lumină și electroni. Brain Res. 323, 65-72. Caldwell, JD, Prange, AJ, Pedersen, CA, 1986. Oxitocina facilitează receptivitatea sexuală a șobolanilor femele tratați cu estrogen. Neuropeptide 7, 175-189. Cameron, JL, Pomerantz, SM, Layden, LM, Amico, JA, 1992. Stimularea dopaminergică a concentrațiilor de oxitocină în plasmă de maimuțe masculi și femele de către apomorfină și un agonist al receptorului D2. J. Clin. Endocrinol. Metab. 75, 855-860. Canteras, NS, Simerly, RB, Swanson, LW, 1995. Organizarea proiecțiilor din nucleul medial al amigdalei: un studiu PHAL la șobolan. J. Comp. Neural. 360, 213-245. Carmichael, MS, Humbert, R., Dixen, J., Palmisano, G., Greeleaf, W., Davidson, JM, 1987. Plasma oxitocinei crește în răspunsul sexual al omului. J. Clin. Endocrinol. Metab. 64, 27-31. Carter, CS, 1992. Oxitocina și comportamentul sexual. Neurosci. Biobehav. Rev 16, 131-144. Carter, CS, Lederhendler, II, Kirkpatrick, B., 1997. Neurobiologia interactivă a afilierii, Analele Academiei de Științe din New York, voi. 807. Academia de Științe din New York, New York. Castelli, MP, Piras, AP, Melis, T., Succu, S., Sanna, F., Melis, MR, Collu, S., Ennas, MG, Diaz, G., Mackie, K., Argiolas, A. , 2007. Receptorii canabinoizi CB1 din nucleul paraventricular și controlul central al erecției penisului: imunocitochimie, autoradiografie și studii comportamentale. Neuroștiință 147, 197-206. Chen, KK, Chang, LS, 2003. Efectul agoniștilor receptorilor de aminoacizi excitatori asupra erecției penisului după administrarea în nucleul paraventricular al hipotalamusului la șobolani. J. Urol. 62, 575-580. Chen, KK, Chan, JYH, Chang, LS, Chen, MT, Chang, SHH, 1992. Elicitarea erecției penisului după activarea formării hipocampului la șobolan. Neurosci. Lett. 141, 218-222. Chen, KK, Chan, JYH, Chang, LS, 1999. Neurotransmisia dopaminergică la nucleul paraventricular al hipotalamusului în reglarea centrală a erecției penisului la șobolan. J. Urol. 162, 237-242. Collins, GT, Truccone, A., Haji-Abdi, F., Newman, AH, Grundt, P., Rice, KC, Husbands, SM, Greedy, Enguehard-Gueiffer, C. , J., Wang, S., Katz, JL, Grandy, DK, Sunahara, RK, Woods, JH, 2009. Efectele pro-erectile ale agoniștilor dopamine D2 sunt mediate de receptorul D3 la șobolani și șoareci. J. Pharmacol. Exp. Ther. 329, 210-217. Coolen, LM, Allard, J., Truitt, WA, McKenna, KE, 2004. Reglementarea centrală a ejaculării. Physiol. Behav. 83, 203-215. Cui, SS, Bowen, RC, Gu, GB, Hannesson, BK, Yu, PH, Zhang, X., 2001. Prevenirea sindromului de întrerupere a canabinoidului de către litiu: implicarea activării neuronale oxitocinergice. J. Neurosci. 21, 9867-9876. Dahlstrom, A., Fuxe, K., 1964. Dovezi privind existența neuronilor care conțin monoamină în sistemul nervos central. I. Demonstrarea monoaminelor în corpurile celulare ale neuronilor brainstem. Acta Physiol. Scand. 62 (Suppl. 232), 1-54. Depoortère, R., Bardin, L., Rodrigues, M., Abrial, E., Aliaga, M., Newman-Tancredi, A., 2009. Erecția penisului și căscarea indusă de agoniștii dopaminergici ai receptorilor de tip D2 la șobolani: influența tulpinii și contribuția dopaminei D2, dar nu și a receptorilor D3 și D4. Behav. Pharmacol. 20, 303-311. Domes, G., Heinrichs, M., Buchel, C., Braus, DF, Herpertz, SC, 2007. Oxitocina atenuează răspunsurile amigdale la fețele emoționale indiferent de valență. Biol. Psihiatrie 62, 11871190. Dominguez, J., Riolo, JV, Xu, Z., Hull, ME, 2001. Reglarea prin amigdala mediană a copulației și eliberarea dopaminei preoptice mediale. J. Neurosci. 21, 349-355. Donaldson, ZR, Young, LJ, 2009. Oxitocina, vasopresina și neurogenetica socialității. Știință 322, 900-904. Eaton, RG, Markowski, VF, Lumley, LA, Thompson, JT, Moses, J., Hull, EM, 1991. Receptorii D2 din nucleul paraventricular reglează răspunsurile genitale și copulația la șobolanii masculi. Pharmacol. Biochem. Behav. 39, 177-181. Ebner, K., Bosch, JO, Krömer, SA, Singewald, N., Neumann, ID, 2005. Eliberarea oxitocinei în amigdala centrală a șobolanului modulează comportamentul de stres-coping și eliberarea aminoacizilor excitatori. Neuropsihopharmacologie 30, 223-230. Enguehard-Gueiffier, C., Hübner, H., El Hakmaoui, A., Allouchi, H., Gmeiner, P., Argiolas, A., Melis, MR, Gueiffier, A., 2006. 2 - [(4-fenilpiperazin-1-il) metil] imidazo (di) azine ca liganzi selectivi D4. Inducerea erecției penisului de către 2- [4- (2-metoxifenil) piperazin-1-ilmetil] imidazo [1,2-a] piridină (PIP3EA), un agonist potent și selectiv D4. J. Med. Chem. 49, 3938-3947. Everitt, BJ, 1990. Motivația sexuală: o analiză neuronală și comportamentală a mecanismelor care stau la baza șobolanilor masculi care răspund apetitului și copulației. Neurosci. Biobehav. Rev 14, 217-232. Fibiger, HC, Phillips, AG, 1988. Sistem dopamină mesocorticolimbic și recompensă. Ann. N. Y. Acad. Sci. 5, 206-215. Franceză, SJ, Totterdell, S., 2003. Neuronii individuali de nucleu accumbens-proiecție primesc ambii amigdali bazolateriali și aferenți ventriculare subîtrai la șobolani. Neuroștiință 119, 19-31. 954 MR Melis, A. Argiolas / Neuroștiințe și recenzii biobehaviorale 35 (2011) 939-955 Freund-Mercier, MJ, Richard, P., 1981. Efectele incitante ale injecțiilor intraventriculare de oxitocină asupra reflexului de ejecție a laptelui la șobolan. Neurosci. Lett. 23, 193-198. Freund-Mercier, MJ, Richard, P., 1984. Dovezi electrofiziologice pentru controlul facilitat al neuronilor de oxitocină prin oxitocină în timpul alăptării la șobolan. J. Physiol. (Lond.) 352, 447-466. Freund-Mercier, MJ, Stoeckel, ME, 1995. Autoreceptorii somatodendritici pe neuronii oxitocinei. În: Ivell, R., Russel, JA (Eds.), Oxitocină, abordări celulare și moleculare în medicină și cercetare. Adv. Exp. Med. Biol., 365. Plenum Press, New York și Londra, pp. 185-194. Freund-Mercier, MJ, Stoeckel, ME, Palacios, JM, Pazos, JM, Richard, PH, Porte, A., 1987. Caracteristicile farmacologice și distribuția anatomică a situsurilor de legare a oxitocinei 3H în creierul de șobolan Wistar studiat prin autoradiografie. Neuroștiință 20, 599-614. Giuliano, F., Rampin, O., 2000. Controlul central al erecției penisului. Neurosci. Biobehav. Rev 24, 517-533. Giuliano, F., Allard, J., 2001. Dopamina și funcția sexuală. Int. J. Impotența Res. 13 (Suppl. 3), 18-28. Giuliano, F., Rampin, O., 2004. Controlul neural al erecției. Physiol. Behav. 83, 189-201. Giuliano, F., Bernabe, J., McKenna, KE, Longueville, F., Rampin, O., 2001. Efectul proecttilar al oxitocinei asupra șobolanilor anesteziați. Am J. Physiol. Regul. Integ. Comp. Physiol. 280, R1870-R1877. Goto, Y., Grace, AA, 2005. Modularea dopaminergică a unității limbic și corticale a nucleului accumbens în comportamentul orientat spre țintă. Nat. Neurosci. 8, 805-812. Hawthorn, J., Ang, VT, Jenkins, JS, 1985. Efectele leziunilor în nucleele paraventriculare hipotalamice, supraoptice și suprachiasmatice asupra vasopresinei și oxitocinei în creierul șobolanului și măduvei spinării. Brain Res. 346, 51-57. Heier, RF, Dolak, LA, Duncan, JN, Hyslop, DK, Lipton, MF, Martin, LJ, Mauragis, MA, Piercey, MF, Nichols, NF, Schreur, MW. Sinteza și activitățile biologice ale (R) -5,6-dihidro-N, N-dimetil-4H-imidazo [4,5,1-ij] chinolin-5-amina) și metaboliții săi. J. Med. Chem. 40, 639-646. Hsieh, GC, Hollingsworth, PR, Martino, B., Chang, R., Terranova, MA, O'Neill, AB, Lynch, JJ, Moreland, RB, Donnelly-Roberts, DL, Kolasa, T., Mikusa, JP , McVey, JM, Marsh, KC, Sullivan, JP, Brioni, JD, 2004. Mecanisme centrale care reglează erecția penisului la șobolanii conștienți: sistemele dopaminergice legate de efectul procretil al apomorfinei. J. Pharmacol. Exp. Ther. 308, 330-338. Huang, PL, Dawson, TM, Bredt, DS, Snyder, SH, Fishman, MC, 1993. Distrugerea țintită a genei sintazei oxidului de azot neuronal. Celula 75, 1273-1286. Huber, D., Veinante, P., Stoop, R., 2005. Vasopresina și oxitocina excită populațiile neuronale distincte în amigdala centrală. Știință 308, 245-248. Hull, EM, Warner, RK, Bazzett, TJ, Eaton, RC, Thompson, JT, 1989. Raportul D2 / D1 din zona preoptică mediană afectează copularea șobolanilor masculi. J. Pharmacol. Exp. Ther. 251, 422-427. Hull, EM, Du, J., Lorrain, DS, Matuszewich, L., 1995. Dopamina extracelulară în zona preoptică mediană: implicații pentru motivația sexuală și controlul hormonal al copulației. J. Neurosci. 15, 7465-7471. Hull, EM, Meisel, RL, Sachs, BD, 2002. Comportamentul sexual al bărbatului. În: Pfaff, DW, Arnold, AP, Etgen, AM, Fahrbach, SE, Rubin, RT (Eds.), Hormoni, creier și comportament. Academic Press, New York, pp. 3-137. Hurlemann, R., Patin, A., Onur, OA, Cohen, MX, Baumgartner, T., Metzler S., Dziobek I., Gallinat J., Wagner M., Maier W. Kendrick, KM, 2010. Oxitocina sporește învățarea armată socială și empatia emoțională la om la amigdala. J. Neurosci. 30, 4999-5007. Ivell, R., Russel, JA, 1995. Oxytocina: Abordări celulare și moleculare în medicină și cercetare. Avansuri în medicina experimentală și biologie, voi. 395. Plenum Press, New York. Kelley, AE, Domesick, VB, 1982. Distribuția proiecției de la formarea hipocampului la nucleul accumbens la șobolan: un studiu anterograd și retrograd - studiu de peroxidază a hreanului. Neuroștiință 7, 2321-2335. Kimura, Y., Naitou, Y., Wanibuchi, F., Yamaguchi, T., 2008. Activarea receptorului 5-HT (2C) este un mecanism comun în ceea ce privește efectele procretile ale apomorfinei, oxitocinei și melanotanului II la șobolani. E. J. Pharmacol. 589, 157-162. Kondo, Y., Sachs, BD, Sakuma, Y., 1998. Importanța amigdalei mediane în erecția penisului de șobolan evocată de stimuli la distanță de la femelele estroase. Behav. Brain Res. 91, 215-222. Kovacs, GL, Sarnyai, Z., Szabo, G., 1998. Oxitocina și dependența: o revizuire. Psychoneuroendocrinologie 23, 945-962. Lee, HJ, Macbeth, AH, Pagani, JH, Scott Young 3rd, W., 2009. Oxitocina: marele facilitator al vieții. Prog. Neurobiol. 88, 127-151. Lindvall, O., Bjorklund, A., Skagerberg, G., 1984. Demonstrarea istochemică selectivă a sistemelor terminale dopaminice în di- și telencephalon de șobolan: noi dovezi pentru inervația dopaminergică a nucleelor neurosecretorilor hipotalamici. Brain Res. 306, 19-30. Liu, YC, Salamone, JD, Sachs, BD, 1997. Scăderea răspunsului sexual după leziunile nucleului paraventricular al hipotalamusului la șobolanii masculi. Behav. Neurosci. 111, 1361-1367. Löber, S., Tschammer, N., Hübner, H., Melis, MR, Argiolas, A., Gmeiner, P., 2009. Cadrul azulene ca un nou bioizoster: proiectarea unor liganzi puternici ai dopaminei D4 care induce erecția penisului. Chem. Med. Chem. 4, 325-328. McCleskey, EW, Fox, AP, Feldman, DH, Cruz, LJ, Olivera, BM, Tsien, RW, Yoshikami, D., 1987. _-Conotoxina: blocarea directă și persistentă a anumitor tipuri de canale de calciu în neuroni, dar nu și în mușchi. Prot. Nat. Acad. Sci. Statele Unite ale Americii 84, 4327-4331. McKenna, KE, 2000. Unele propuneri privind organizarea controlului sistemului nervos central asupra erecției penisului. Neurosci. Biobehav. Rev 24, 535-540. Marson, L., McKenna, KE, 1992. Un rol al 5-hidroxitriptaminei în inhibarea descrescătoare a reflexelor sexuale spinale. Exp. Brain Res. 88, 313-318. Marson, L., McKenna, KE, 1996. Grupurile de celule CNS implicate în controlul mușchilor ischiocavernos și bulbospongiosus: un studiu de urmărire transneuronal utilizând virusul pseudorabies. J. Comp. Neural. 374, 161-179. Meisel, RL, Sachs, BD, 1994. Fiziologia comportamentului sexual masculin. În: Knobil, E., Neil, J. (Eds.), The Physiology of Reproduction, voi. 2, ediția a doua. Raven Press, New York, p. 3-96. Melin, P., Kihlstrom, JE, 1963. Influența oxitocinei asupra comportamentului sexual la iepuri masculi. Endocrinologie 73, 433-435. Melis, MR, Argiolas, A., 1995a. Dopamina și comportamentul sexual. Neurosci. Biobehav. Rev 19, 19-38. Melis, MR, Argiolas, A., 1995b. Donații de oxid nitric induc erecția penisului și căscatul atunci când sunt injectați în sistemul nervos central al șobolanilor de sex masculin. E. J. Pharmacol. 294, 1-9. Melis, MR, Argiolas, A., 2003. Neurotransmisia centrală oxitocinergică: o țintă de medicament pentru terapia disfuncției erectile psihogenice. Curr. Obiectivele de droguri 4, 55-66. Melis, MR, Argiolas, A., Gessa, GL, 1986. Cazurile induse de oxitocină și erecția penisului: locul de acțiune în creier. Brain Res. 398, 259-265. Melis, MR, Argiolas, A., Gessa, GL, 1987. Aparatul provocat de apomorfină și erecția penisului: locul de acțiune în creier. Brain Res. 415, 98-104. Melis, MR, Argiolas, A., Gessa, GL, 1989a. Apomorfina crește concentrațiile plasmatice ale oxitocinei la șobolani. Neurosci. Lett. 98, 351-355. Melis, MR, Argiolas, A., Gessa, GL, 1989b. Dovada că apomorfina induce erecția penisului și căscatul prin eliberarea oxitocinei în sistemul nervos central. E. J. Pharmacol. 164, 565-570. Melis, MR, Argiolas, A., Stancampiano, R., Gessa, GL, 1990. Efectul apomorfinei asupra concentrațiilor de oxitocină în diferite zone ale creierului și în plasma șobolanilor masculi. E. J. Pharmacol. 182, 101-107. Melis, MR, Mauri, A., Argiolas, A., 1994a. Creșterea penisului indusă de apomorfină și oxitocină și căscarea în șobolanii intacte și castrați: efectul steroizilor sexuali. Neuroendocrinologie 59, 349-354. Melis, MR, Stancampiano, R., Argiolas, A., 1994b. Erecția penisului și căscarea indusă de injecțiile paraventriculare NMDA sunt mediate de oxitocină. Pharmacol. Biochem. Behav. 48, 203-207. Melis, MR, Stancampiano, R., Argiolas, A., 1994c. Prevenția prin intermediul esterului metilic al NG-nitro-1-argininei al erecției și căscării penile induse de apomorfină și oxitocină: locul de acțiune în creier. Pharmacol. Biochem. Behav. 48, 799-804. Melis, MR, Succu, S., Argiolas, A., 1996. Agoniștii dopamine cresc producția de oxid nitric în nucleul paraventricular al hipotalamusului: corelarea cu erecția penisului și căscatul. E. J. Neurosci. 8, 2056-2063. Melis, MR, Succu, S., Iannucci, U., Argiolas, A., 1997. Oxitocina crește producția de oxid nitric în nucleul paraventricular al hipotalamusului: corelarea cu erecția penisului și căscatul. Reg. Peptidele 69, 105-112. Melis, MR, Succu, S., Mauri, A., Argiolas, A., 1998. Producția de oxid nitric este crescută în nucleul paraventricular al hipotalamusului la șobolanii masculi în timpul erecțiilor și copulației fără penis. E. J. Neurosci. 10, 1968-1974. Melis, MR, Spano, MS, Succu, S., Argiolas, A., 1999a. Antagonistul de oxitocină d (CH2) 5Tyr (Me) 2-Orn8-vasotocina reduce erecțiile penisului fără contact cu șobolanii masculi. Neurosci. Lett. 265, 171-174. Melis, MR, Succu, S., Spano, MS, Argiolas, A., 1999b. Morfina injectată în nucleul paraventricular al hipotalamusului împiedică erecțiile fără contact și afectează copularea: implicarea oxidului nitric. E. J. Neurosci. 11, 1857-1864. Melis, MR, Spano, MS, Succu, S., Argiolas, A., 2000. Efectul antagoniștilor receptorilor de aminoacizi excitatori, dopamine și receptori ai oxitocinei asupra erecțiilor penisului necontact și a producției de oxid nitric paraventricular la șobolani masculi. Behav. Neurosci. 114, 849-857. Melis, MR, Succu, S., Mascia, MS, Cortis, L., Argiolas, A., 2003. Stimularea extracelulară a dopaminei în nucleul paraventricular al șobolanilor masculi în timpul activității sexuale. E. J. Neurosci. 17, 1266-1272. Melis, MR, Succu, S., Mascia, MS, Argiolas, A., 2004a. Antagonismul receptorilor CB1 canabinoizi în nucleul paraventricular al șobolanilor masculi induce erecția penisului. Neurosci. Lett. 359, 17-20. Melis, MR, Succu, S., Mascia, MS, Cortis, L., Argiolas, A., 2004b. Extra aminoacizii excitatori cresc în nucleul paraventricular al șobolanilor masculi în timpul activității sexuale: rol principal al receptorilor NMDA în funcția erectilă. E. J. Neurosci. 19, 2569-2575. Melis, MR, Succu, S., Mascia, MS, Argiolas, A., 2005. PD-168,077, un agonist selectiv al dopaminei D4, induce erecția penisului când este injectat în nucleul paraventricular al șobolanilor masculi. Neurosci. Lett. 379, 59-62. Melis, MR, Succu, S., Mascia, MS, Sanna, F., Melis, T., Succu, S., Castelli, MP, Argiolas, A., 2006a. Erecția penisului indusă de SR 141716A la șobolanii masculi: implicarea acidului glutamic paraventricular și a oxidului nitric. Neuropharmacologie 50, 219-228. Melis, MR, Succu, S., Sanna, F., Mascia, MS, Melis, T., Enguehard-Gueiffier, C., Hubner H., Gmenier P., Gueiffier A., Argiolas A., 2006b. PIP3EA și PD168077, doi agoniști selectivi ai dopaminei D4, induc erecția penisului la șobolanii masculi: locul și mecanismul de acțiune în creier. E. J. Neurosci. 24, 2021-2030. Melis, MR, Melis, T., Cocco, C., Succu, S., Sanna, F., Pillolla, G., Boi, A., Ferri, GL, Argiolas, A., 2007. Oxitocina injectată în zona tegmentală ventrală induce erecția penisului și crește dopamina extracelulară în nucleul accumbens MR Melis, A. Argiolas / Neuroștiințe și recenzii biobehaviorale 35 (2011) 939-955 955 și nucleul paraventricular al hipotalamusului de șobolani masculi. E. J. Neurosci. 26, 1026-1035. Melis, MR, Sanna, F., Succu, S., Zarone, P., Boi, A., Argiolas, A., 2009a. Rolul oxitocinei în fazele anticipative și consumatoare ale comportamentului sexual al șobolanilor masculi. În: Jastrow, H., Feuerbach, D. (Eds.), Manualul Cercetării Oxitocinelor: Sinteza, depozitarea și eliberarea, acțiunile și formele de droguri. Nova Publishers Inc, New York, SUA, pp. 109-125. Melis, MR, Succu, S., Sanna, F., Boi, A., Argiolas, A., 2009b. Oxytocinul injectat în subiculul ventral sau nucleul cortexului posterior al amigdalei induce erecția penisului și crește dopamina extracelulară în nucleul accumbens al șobolanilor masculi. E. J. Neurosci. 30, 1349-1357. Melis, MR, Succu, S., Cocco, C., Caboni, E., Sanna, F., Boi, A., Ferri, GL, Argiolas, A., 2010. Oxitocina induce erecția penisului când este injectată în subcultura ventrală: rolul oxidului azotic și al acidului glutamic. Neuropharmacologie 58, 1153-1160. Moreland, RB, Nakane, M., Donnelly-Roberts, DL, Miller, LN, Chang, R., Uchic, ME, Terranova MA, Gubbins EJ Helfrich RJ Namovic MT, Maestri, JN, Brioni, JD, 2004. Farmacologie comparativă a liniilor celulare stabile cu receptori umani ai dopaminei D (2) cuplați la fluxul de calciu prin Galpha (qo5). Biochem. Pharmacol. 68, 761-772. Moos, F., Freund-Mercier, MJ, Guerne, Y., Guerne, JM, Stoeckel, ME, Richard, P., 1984. Eliberarea oxitocinei și vasopresinei de către nucleele magnocelulare in vitro: efect de facilitare specific al oxitocinei pe propria eliberare. J. Endocrinol. 102, 63-72. Murphy, MR, Seckl, JR, Burton, S., Checkley, SA, Lightman, SL, 1987. Modificări ale secreției de oxitocină și vasopresină în timpul activității sexuale la bărbați. J. Clin. Endocrinol. Metab. 65, 738-741. Nishimori, K., Young, LJ, Guo, Q., Wang, Z., Insel, TR, Matzuk, MM, 1996. Oxytocinul este necesar pentru îngrijire, dar nu esențial pentru naștere sau comportament reproductiv. Proc. Natl. Acad. Sci. Statele Unite ale Americii 93, 11699-11704. Patel S., Freedman, S., Chapman, KL, Emms F., Fletcher, AE, Knowles, M., Marwood R., McCallister G., Myers J., Curtis J., Kulagowski, JJ, Leeson, PD, Ridgill, M., Graham, M., Matheson, S., Rathbone, D., Watt, AP, Bristow, LJ, Rupniak, NM, Baskin, , 1997. Profilul biologic al L745,870, un antagonist selectiv cu afinitate mare pentru receptorul D4 al dopaminei. J. Pharmacol. Exp. Ther. 283, 636-647. Pedersen, CA, Caldwell, JD, Jirikowski, GF, Insel, TR, 1992. Oxitocină în comportamentele materne, sexuale și sociale, Analele Academiei de Științe din New York, voi. 652. Academia de Științe din New York, New York. Petrovic, P., Kalisch, R., Singer, T., Dolan, RJ, 2008. Oxitocina atenuează evaluările afective ale fețelor condiționate și activitatea amigdală. J. Neurosci. 28, 6607-6615. Pfaus, JG, Everitt, BJ, 1995. Psihofarmacologia comportamentului sexual. În: Knobil, FE, Kupfer, DJ (Ed.), Psihofarmacologie: a patra generație de progres. Raven Press, New York, p. 742-758. Rajfer, J., Aronson, WJ, Bush, PA, Dorey, FJ, Ignarro, LJ, 1992. Oxidul nitric ca mediator al relaxării cavernosului corpului ca răspuns la neurotransmisia nonadrenergică, noncholinergică. N. Engl. J. Med. 326, 90-94. Roeling, TAP, Van Erp, AMM, Meelis, W., Kruk, MR, Veening, JG, 1991. Efectele comportamentale ale NMDA injectate în nucleul paraventricular hipotalamic al șobolanului. Brain Res. 550, 220-224. Sachs, BD, 1997. Erecția a fost evocată la șobolanii masculi prin mirosul aerului din femelele estroase. Physiol. Behav. 62, 921-924. Sachs, BD, 2000. Contextuale abordări ale fiziologiei și clasificării funcției erectile, disfuncției erectile și excitării sexuale. Neurosci. Biobehav. Rev 24, 541-560. Sachs, BD, 2007. O definiție contextuală a excitației sexuale masculine. Horm. Behav. 51, 569-578. Sanchez, F., Alonso, JR, Arevalo, R., Blanco, E., Aijon, J., Vazquez, R., 1994. Coexistența NADPH-diaforazei cu vasopresina și oxitocina în nucleele neurosecretorilor magnocelulari hipotalamici ai șobolanului. Cell Tissue Res. 276, 31-34. Sanna, F., Succu, S., Boi, A., Melis, MR, Argiolas, A., 2009. Inhibitorii de fosfodiesterază tip 5 facilitează erecțiile non-contact la șobolanii masculi: locul de acțiune în creier și mecanismul de acțiune. J. Sex. Med. 6, 2680-2689. Saphier, D., Feldman, S., 1987. Efectele stimulilor septali și hipocampali asupra neuronilor nucleului paraventricular. Neuroștiință 20, 749-755. Sato-Suzuki, I., Kita, I., Oguri, M., Arita, H., 1998. Răspunsuri căsătorii stereotipice induse de stimularea electrică și chimică a nucleului paraventricular al șobolanului. J. Neurophysiol. 80, 2765-2775. Schuman, EM, Madison, DV, 1994. Oxidul nitric și funcția sinaptică. Ann. Rev Neurosci. 17, 153-183. Snyder, SH, 1992. Oxidul de azot: mai întâi într-o nouă clasă de neurotransmițători? Știință 254, 494-496. Sofroniew, MV, 1983. Vasopresina și oxitocina în creierul mamei și măduva spinării. Tendințe Neurosci. 6, 467-472. Sokoloff, P., Schwartz, JC, 1995. Receptoare noi de dopamină o jumătate de deceniu mai târziu. Trends Pharmacol. Sci. 16, 270-275. Southam, E., Garthwaite, J., 1993. Calea de semnalizare a GMP ciclică de oxid nitric în creierul șobolan. Neuropharmacologie 32, 1267-1277. Stancampiano, R., Melis, MR, Argiolas, A., 1994. Erecția penisului și căscarea indusă de agoniștii 5-HT1c la șobolani masculi: relația cu transmiterea dopaminergică și oxitocinergică. E. J. Pharmacol. 261, 149-155. Succu, S., Mascia, MS, Sanna, F., Melis, T., Argiolas, A., Melis, MR, 2006. Antagonistul receptorului de canabinoid CB1 SR 141716A induce erecția penisului prin creșterea acidului glutamic extracelular în nucleul paraventricular al șobolanilor masculi. Behav. Brain Res. 169, 274-281. Succu, S., Sanna, F., Melis, T., Boi, A., Argiolas, A., Melis, MR, 2007. Stimularea receptorilor dopaminergici în nucleul paraventricular al hipotalamusului șobolanilor masculi induce erecția penisului și crește dopamina extracelulară în nucleul accumbens: implicarea oxitocinei centrale. Neuropharmacologie 52, 1034-1043. Succu, S., Sanna, F., Cocco, C., Melis, T., Boi, A., Ferri, GL, Argiolas, A., Melis, MR, 2008. Oxitocina induce erecția penisului când este injectată în zona tegmentală ventrală a șobolanilor masculi: rolul oxidului nitric și GMP ciclic. E. J. Neurosci. 28, 813-821. Tanda, G., Pontieri, FE, Di Chiara, G., 1997. Canabinoidele și activarea heroinei a transmisiei mezolimbice de dopamină printr-un mecanism comun al receptorului opioid mu1. Știință 276, 2048-2050. Tang, Y., Rampin, O., Calas, A., Facchinetti, P., Giuliano, F., 1998. O inoculare inoxidantă și serotoninergică a nucleelor lombosacrale identificate care controlează erecția penisului la șobolanii masculi. Neuroștiință 82, 241-254. Theodosis, DT, 1985. Terminalele oxitocin-imunoreactive sinapsează pe neuronii oxitocinei în nucleele supraoptice. Natura (Londra) 313, 682-684. Tindall, JS, 1974. Stimulele care cauzează eliberarea de oxitocină. În: Geiger, SR, Knobil, E., Sawyer, WH, Greef, R., Astwood, EB (Eds.), Manual de fiziologie. Sectă. 7, Endocrinology, voi. IV. Societatea Americană de Fiziologie, Washington DC, pp. 257-267. Torres, G., Lee, S., Rivier, C., 1993. Ontogenia sintezei de oxid nitric hipotalamic de șobolan și colocalizare cu neuropeptide. Mol. Celulă Neurosci. 4, 155-163. Uhl-Bronner, S., Waltisperger, E., Martinez-Lorenzana, G., Condes, LM, Freund-Mercier, MJ, 2005. Exprimarea dimorfică sexuală a situsurilor de legare a oxitocinei din creier și măduva spinării șobolanului. Neuroștiință 135, 147-154. Vaccari, C., Lolait, SJ, Ostrowski, NL, 1998. Distribuția comparativă a vasopresinei V1b și a acizilor ribonucleici ai receptorilor de oxitocină în creier. Endocrinologie 139, 5015-5033. Van Den Pol, A., 1991. Glutamatul și imunoreactivitatea aspartat în axonii presinaptici hipotalamici. J. Neurosci. 11, 2087-2101. Veronneau-Longueville, F., Rampin, O., Freund-Mercier, MJ, Tang, Y., Calas, A., Marson, L., McKenna, KE, Stoeckel, ME, Benoit, Giuliano, F. , 1999. Inervarea inoxitonică a nucleelor autonome care controlează erecția penisului la șobolan. Neuroștiință 93, 1437-1447. Vincent, SR, Kimura, H., 1992. Cartografia histochimică a sintazei de oxid nitric în creierul de șobolan. Neuroștiință 46, 755-784. Wagner, CK, Clemens, LG, 1993. Calea care conține căi neurofizine din nucleul paraventricular al hipotalamusului la un nucleu motor dimoramic sexual în măduva spinării lombare. J. Comp. Neural. 336, 106-116. Winslow, JT, Insel, TR, 1991. Starea socială în perechi de maimuțe veverițe masculine determină răspunsul comportamental la administrarea centrală de oxitocină. J. Neurosci. 11, 2032-2038. Wise, RA, Rompre, P.-P., 1989. Brain dopamina și recompensa. Ann. Rev Psychol. 40, 191-225. Witt, DM, Insel, TR, 1994. Comportamentul sexual al bărbaților activează proteina de tip c-fos în neuronii oxitocinei din nucleul paraventricular al hipotalamusului. J. Neuroendocrinol. 6, 13-18. Witter, MP, 2006. Conexiuni ale subiculului șobolanului: topografie în raport cu organizarea coloană și laminară. Behav Brain Res. 174, 251-264. Woodruff, GN, Foster, AC, Gill, R., Kemp, JA, Wong, EH, Iversen, LL, 1987. Interacțiunea dintre MK-801 și receptorii pentru N-metil-d-aspartat: consecințe funcționale. Neuropharmacologie 26, 903-909. Yamashita, H., Shigeru, O., Inenaga, K., Kasai, M., Uesugi, S., Kannan, H., Kaneko, T., 1987. Oxitocina predomină în mod predominant neuronii de oxitocină presupuși în nucleul supraoptic al șobolanilor in vitro. Brain Res. 416, 364-368. Yells, DP, Hendricks, SE, Prendergast, MA, 1992. Leziunile nucleului paragigantocelular: efecte asupra comportamentului de împerechere la șobolanii masculi. Brain Res. 596, 73-79. Young, WS, Shepard, E., Amico, J., Hennighausen, L., LaMarca, ME, McKinney, C., Ginns, EI, 1996. Deficitul de oxitocină din șoarece împiedică ejecția laptelui, dar nu și fertilitatea sau fătul. J. Neuroendocrinol. 8, 847-854. Zahran, AR, Vachon, P., Courtois, F., Carrier, S., 2000. Creșterea presiunii penisului intracavernos după injectarea de agoniști ai receptorilor de aminoacizi excitatori în nucleul paraventricular hipotalamic al șobolanilor anesteziați. J. Urol. 164, 1793-1797.