YBOP КОММЕНТАРИИ: Эффект Кулидж за власть интернет-порно. Эффект Кулиджа - явление, наблюдаемое у видов млекопитающих, когда самцы (и в меньшей степени самки) проявляют возобновленный сексуальный интерес, если их вводят новым восприимчивым сексуальным партнерам, даже после отказа от секса от предыдущих, но все еще доступных сексуальных партнеров. Сексуальная новизна преодолевает это привыкание с новым возбуждением, вызванным высоким допамином. Непрерывный поток новизны, что делает интернет-порно настолько отличается от порно прошлого.
- Денис Ф. Фиорино,
- Ариан Кори, и
- Энтони Г. Филлипс
-
Журнал неврологии, 15 июня 1997 года, 17 (12): 4849-4855;
Резюме
Эффект Кулиджа описывает возобновление сексуального поведения у «сексуально насыщенного» животного в ответ на нового восприимчивого помощника. Учитывая роль системы мезолимбического дофамина (DA) в инициировании и поддержании мотивированного поведения, микродиализ использовался для мониторинга передачи DAU при присадке, сексуальном насыщении и возобновлении сексуального поведения. По соглашению с более ранними сообщениями, представление эстральной женщины за экраном и копуляцией было связано со значительным увеличением выбросов NAC DA. Возвращение концентрации НАС DA к исходным значениям совпало с периодом полового сытости, хотя концентрации метаболитов DA, дигидроксифенилуксусной кислоты и гомованиловой кислоты оставались повышенными. Презентация новой восприимчивой женщины за экраном привела к небольшому увеличению NAC DA, которое значительно увеличилось при возобновлении совокупления с новой женщиной. Настоящие данные свидетельствуют о том, что стимулирующие свойства новой восприимчивой самки могут способствовать увеличению передачи NAC DA у сексуально насыщенной мужской крысы, и это, в свою очередь, может быть связано с возобновлением сексуального поведения.
Введение
Самца крысы, достигшего состояния насыщения после спаривания, можно побудить к повторному спариванию, если первоначальную самку заменить новой восприимчивой самкой. Это явление получило название эффекта Кулиджа и наблюдалось у ряда видов млекопитающих ( Wilson et al., 1963 ). Общие факторы, такие как усталость или двигательная депрессия, недостаточны для объяснения кажущегося состояния полового насыщения, поскольку стимулы от новой самки все еще могут вызвать спаривание. Половое насыщение также можно в значительной степени «обратить» фармакологически путем введения различных препаратов, воздействующих на разные нейромедиаторные системы. К таким препаратам относятся йохимбин, 8-OH-DPAT ( Rodriguez-Manzo и Fernandez-Guasti, 1994 , 1995a ), налаксон ( Pfaus и Gorzalka, 1987 ; Rodriguez-Manzo и Fernandez-Guasti, 1995a , b ) и апоморфин ( Mas et al., 1995c ). Хотя нельзя исключить периферическое действие этих препаратов (например, адренергическое воздействие на эректильную функцию), на основе экспериментов по селективному центральному норадренергическому поражению ( Rodriguez-Manzo и Fernandez-Guasti, 1995a ) и экспериментов по микродиализу, в которых отслеживался дофаминергический метаболизм в медиальной преоптической области ( Mas et al., 1995a , b ) было высказано предположение о влиянии на центральные механизмы, лежащие в основе сексуального насыщения.
Учитывая, что центральные механизмы могут опосредовать возобновление сексуального поведения, характерного для эффекта Кулиджа, вероятным кандидатом является мезолимбическая дофаминовая (ДА) система, проецирующаяся из вентральной тегментальной области в прилежащее ядро. Мезолимбическая ДА, по-видимому, выступает в качестве основного модулятора в сложных интегративных процессах, включающих оценку стимулов окружающей среды, таких как сигналы от сексуально восприимчивой самки, и организацию целенаправленного поведения, включая копуляцию ( Fibiger and Phillips, 1986 ; Blackburn et al., 1992 ; Phillips et al., 1992 ; LeMoal, 1995 ; Salamone, 1996 ).
Хотя дофаминергические нейроны среднего мозга реагируют на первичные вознаграждения и сигналы, предсказывающие вознаграждение, новые или непредсказуемые стимулы окружающей среды вызывают наиболее сильную активацию нейронов при повторных тренировочных сессиях ( Fabre et al., 1983 ; Schultz, 1992 ; Mirenowicz and Schultz, 1994 ). Существует множество доказательств, подтверждающих важную вспомогательную роль мезолимбического дофамина в инициации и поддержании полового поведения крыс ( Pfaus и Everitt, 1995 ), а ряд исследований с использованием микродиализа сообщают об увеличении высвобождения дофамина из прилежащего ядра во время аппетитивной и консумматорной фаз полового поведения самцов ( Pfaus et al., 1990 ; Pleim et al., 1990 ; Damsma et al., 1992 ; Wenkstern et al., 1993 ; Fumero et al., 1994 ; Mas et al., 1995b ). Однако данных о нейрохимических коррелятах полового насыщения и возобновления полового поведения сравнительно мало. Применение микродиализа in vivo для мониторинга мезолимбической дофаминовой нейротрансмиссии во время эффекта Кулиджа предоставляет уникальную возможность изучить роль дофамина в прилежащем ядре в копуляции, сексуальном насыщении и возобновлении копуляции.
Эксперимент по микродиализу был проведен для определения следующего: (1), связано ли начало сексуального насыщения возвратом внеклеточных DA-концентраций в НАК до значений прекопуляции или ниже и (2), является ли восстановление копулятивного поведения в " сексуально насыщенная "крыса с новой восприимчивой самкой коррелирует с увеличением оттока НАС ДА.
МАТЕРИАЛЫ И МЕТОДЫ
Субъекты исследования. Самцы крыс породы Спраг-Доули, полученные из Центра по уходу за животными (Университет Британской Колумбии), и самки крыс породы Лонг-Эванс, полученные от компании Charles River Canada (Сент-Констант, Квебек, Канада), содержались в клетках из проволочной сетки (18 × 25 × 65 см; по пять особей в клетке) в отдельных помещениях для содержания животных. В помещениях поддерживалась температура около 20°C при обратном 12-часовом цикле свет/темнота. Крысы имели неограниченный доступ к пище (корм для крыс Purina) и воде.
Перед микродиализом головного мозга проводилось хирургическое вмешательство и поведенческое тестирование. Самкам крыс проводили двустороннюю овариэктомию под галотановой анестезией (Флуотан, Ayerst Laboratories) не менее чем за 4 недели до тестирования. Половая восприимчивость у самок-стимуляторов индуцировалась подкожными инъекциями бензоата эстрадиола (10 мкг) и прогестерона (500 мкг) за 48 и 4 часа соответственно до каждой тестовой сессии. Самцов крыс проверяли на половое поведение дважды, с интервалом в 4 дня, в плексигласовых камерах (35 × 35 × 40 см) с сетчатым полом. Только самцам, достигшим критерия эффективности, включающего интромиссию в течение 5 минут после предъявления самки и эякуляцию в течение 15 минут после первой интромиссии, во время двух скрининговых тестов имплантировали направляющие канюли для микродиализного зонда.
Самцы крыс ( n = 5) были анестезированы гидрохлоридом кетамина (100 мг/кг, внутрибрюшинно) и ксилазином (10 мг/кг, внутрибрюшинно) перед стереотаксической операцией. Направляющие канюли для микродиализного зонда (19 калибр) были имплантированы билатерально над прилежащим ядром (координаты от брегмы: передняя часть, +1.7 мм; медиальная часть, ± 1.1 мм; вентральная часть, −1.0 мм; плоский череп) и закреплены на черепе с помощью стоматологического акрила и ювелирных винтов. Двусторонняя имплантация направляющих канюль использовалась для максимального повышения вероятности успешного проведения эксперимента по микродиализу. К счастью, в данном эксперименте для каждой крысы потребовалась только одна канюля. Самцы крыс содержались индивидуально в больших пластиковых клетках с подстилкой из кукурузных початков до конца эксперимента. Через неделю после операции у крыс было проведено тестирование полового поведения. В ходе этой части тренировки тестовая камера была оборудована раздвижной плексигласовой перегородкой, разделяющей камеру на большое и малое отделения. Самцов крыс помещали в большое отделение, а через 15 минут за перегородкой помещали самку. После 15-минутного подготовительного периода перегородку убирали, и крысам давали возможность спариваться в течение 30 минут. Было проведено три тренировочных сессии, по одной каждые 4 дня. Все крысы достигали критерия выполнения задания в каждой сессии.
Эксперимент с эффектом Кулиджа. Крысам за 12–18 часов до эксперимента с эффектом Кулиджа были имплантированы микродиализные зонды с одной стороны, после чего их поместили в большое отделение экспериментальной камеры со свободным доступом к пище и воде. Утром в день эксперимента образцы микродиализа собирали каждые 15 минут. Эксперимент состоял из следующих семи последовательных фаз: (1) исходный уровень (не менее 60 мин); (2) самка 1 за сеткой (15 мин); (3) спаривание с самкой 1 до истечения 30 минут без попыток спаривания; (4) повторное введение самки 1 за сетку (15 мин); (5) доступ к самке 1 в течение 15 минут при отсутствии попыток спаривания (если попытки спаривания происходили, эта фаза рассматривалась как фаза 3); (6) введение самки 2 за сетку (15 мин); (7) спаривание с самкой 2 в течение 60 мин.
Поведение снималось при слабом освещении с помощью видеосистемы JVC и наблюдалось на видеомониторе, расположенном за пределами комнаты для тестирования. Стандартные показатели сексуального поведения регистрировались с помощью компьютера и соответствующего программного обеспечения ( Holmes et al., 1987 ).
После эксперимента по микродиализу животным давали передозировку хлоральгидрата и перфузировали внутримозговым физиологическим раствором и формалином (4%). Мозги были нарезаны и заморожены, а затем корональные срезы окрашивались крезилово-фиолетовым, чтобы определить размещение микродиализных зондов. В исследованиях поведенческих и нейрохимических методов использовались только крысы с местами размещения зондов в НАК.
Микродиализ и ВЭЖХ-электрохимическое детектирование. Микродиализные зонды имели концентрическую конструкцию с полупроницаемой половолоконной мембраной (2 мм открытой мембраны, наружный диаметр 340 мкм, порог молекулярной массы 65000, Filtral 12, Hospal) на дистальном конце. Зонды перфузировали со скоростью 1.0 мкл/мин модифицированным раствором Рингера (0.01 м фосфатный буфер натрия, pH 7.4, 1.3 мМ CaCl₂ , 3.0 мМ KCl , 1.0 мМ MgCl₂ , 147 мМ NaCl) с помощью герметичного шприца (Hamilton, Reno, NV) и шприцевого насоса (модель 22, Harvard Apparatus, South Natick, MA). Для фиксации микродиализного зонда внутри направляющей канюли использовали направляющее кольцо микродиализного зонда. Для защиты трубки зонда использовалась стальная катушка, прикрепленная к жидкостному шарниру (Instech 375s), установленному сверху испытательной камеры ( Fiorino et al., 1993 ).
Анализируемые вещества микродиализата, включавшие допамин (ДА) и его метаболиты дигидроксифенилуксусную кислоту (ДОПАК) и гомованилиновую кислоту (ГВК), разделяли методом обращенно-фазовой хроматографии (колонка Ultrasphere; Beckman, Фуллертон, Калифорния, ODS 5 мкм, 15 см, внутренний диаметр 4.6 мм) с использованием 0.083 М ацетатного буфера натрия, pH 3.5 (5% метанола). Концентрации анализируемых веществ определяли электрохимическим (ЭХ) детектированием. Аппарат состоял из насоса Bio-Rad (Ричмонд, Калифорния), двухпозиционного инжектора Valco Instruments (Хьюстон, Техас) EC10W, ЭХ-детектора ESA (Бедфорд, Массачусетс) Coulochem II и двухканального самописца (Kipp and Zonen, Богемия, Нью-Йорк). Параметры электрохимического детектора были следующими: электрод 1, +450 мВ; Электрод 2, −300 мВ; и защитная ячейка, −450 мВ. Типичные значения степени извлечения зонда, полученные in vitro при комнатной температуре, составили 22% для DA, 18% для DOPAC и 18% для HVA.
РЕЗУЛЬТАТЫ
Поведение
В таблице 1 представлены поведенческие показатели, полученные в ходе эксперимента по изучению эффекта Кулиджа . Время до начала полового акта, полового акта и эякуляции, а также постэякуляторный интервал после первой эякуляции были аналогичны показателям предыдущей тренировочной сессии (данные не показаны). Это свидетельствует о том, что процедура микродиализа не изменила нормальное половое поведение. Развитие сексуального насыщения, о чем свидетельствует среднее число эякуляций до достижения критерия (7.8 ± 0.5), прогрессивное уменьшение числа интромиссий, предшествующих каждой эякуляции, и прогрессивное увеличение постэякуляторного интервала (данные не показаны), было аналогично тому, что сообщалось в предыдущих исследованиях ( Beach and Jordan, 1956 ; Fowler and Whalen, 1961 ; Fisher, 1962 ; Bermant et al., 1966 ; Rodriguez-Manzo and Fernandez-Guasti, 1994 ; Mas et al., 1995d ). Наблюдалась индивидуальная изменчивость в отношении числа эякуляций, достигнутых с самкой 1, времени, затраченного на копуляцию с самкой 1, и количества предъявлений самки 1, необходимых для достижения критерия насыщения (Таблица 1 , внизу). Некоторым крысам потребовалось несколько повторных введений самки 1 до завершения 5-й фазы ( n = 3). Действия по размещению самки 1 за сеткой и удалению перегородки, возможно, служили основными стимулами, приводящими к спариванию. Следует также отметить, что критерий насыщения в 30 минут без спаривания, хотя и использовался ранее (Beach and Jordan, 1965; Mas et al., 1995b ), является произвольным и не гарантирует, что крыса не стала бы спариваться, если бы у нее было больше времени. Тем не менее, задержки или процедуры удаления и замены не приводили к надежному возобновлению спаривания с самкой 1 (например, фазы 4 и 5).
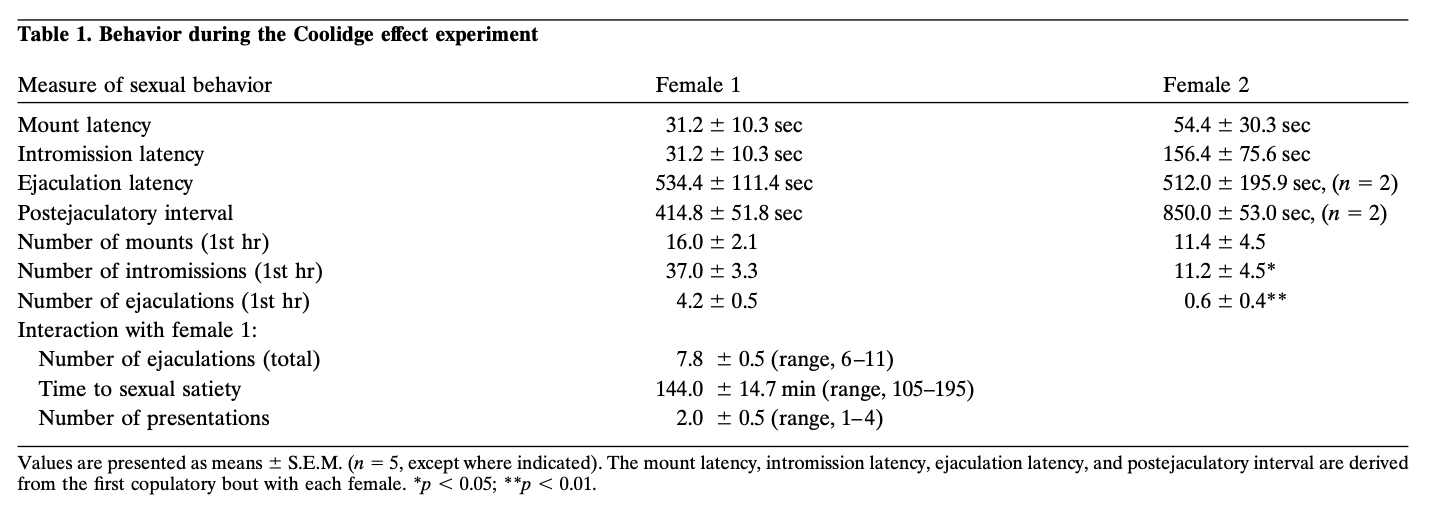
Поведение во время эксперимента эффекта Кулиджа
У всех крыс наблюдался эффект Кулиджа. Активность, связанная с размещением самки 2 за сеткой и, в частности, с удалением перегородки, могла способствовать этому результату, но, опять же, сами по себе эти события были недостаточны для возобновления спаривания на более ранних этапах эксперимента. Сравнения показателей сексуального поведения с самкой 1 и самкой 2 проводились с использованием t- критерия с поправкой Бонферрони. Хотя латентность спаривания и интромиссии в ответ на самку 2 существенно не отличалась от таковой в первом спаривании с самкой 1, в целом сексуальное поведение с самкой 2 было менее выраженным, о чем свидетельствует значительно меньшее количество эякуляций (в среднем 0.6 против 4.2; F = 49.86; p < 0.01) и интромиссий (в среднем 11.2 против 37.0; F = 20.17; p < 0.05) в течение первого часа. Количество попыток спаривания в течение первого часа у самок 1 и 2 существенно не различалось.
Важно отметить, что женщины, используемые во время насыщающей части эксперимента (т. Е. Женский 1), по-прежнему демонстрировали сильное провосприимчивое (т. Е. Прыгающее и дроздное) и восприимчивое (то есть лордоз) поведение в течение полной продолжительности их контакта с мужчиной ,
нейрохимия
Базовые наномолярные концентрации дофамина (ДА) и его метаболитов в микродиализатах, представленные как среднее значение ± стандартная ошибка среднего (SEM), для первых трех исходных образцов составили: ДА, 3.0 ± 0.7; ДОПАК, 619.1 ± 77.7; и ГВА, 234.2 ± 49.0 (без поправки на восстановление зонда; n = 5). Эти значения представляют 100% исходных показателей.
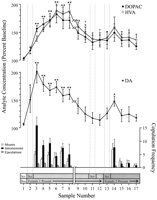
Для нейрохимического анализа использовались поведенчески определенные точки данных, соответствующие каждой фазе эксперимента и общие для каждой крысы. К ним относятся следующие: (1) семь образцов после первого появления самки 1, (2) четыре образца, сопровождающие отсутствие копулятивного поведения с самкой 1, и (3) пять образцов после появления самки 2. На рисунке 1 показаны изменения концентраций дофамина (линейный график, посередине ) и метаболитов дофамина (линейный график, сверху ), параллельные копулятивному поведению (гистограмма, снизу ) во время теста на эффект Кулиджа.
Просмотреть увеличенную версию:
Рис. 1.
Нейрохимические корреляты полового поведения в прилежащем ядре во время эффекта Кулиджа. Первые восемь образцов представляют собой хронологически непрерывные точки данных из фаз 1–3. Образец 1 — это четвертый и последний базовый образец перед спариванием ( Bas ). Образец 2 представляет собой введение самки 1 за сетку ( Scr ). Через 15 мин сетка была убрана, и крысам было позволено спариваться (образцы 3–8). Разрыв на оси x соответствует исключению данных от трех крыс, которые спаривались в течение длительного времени с первоначальной самкой. Последние девять образцов также были хронологически непрерывными. Образцы 9 и 10 соответствуют периоду насыщения фазы 3 (т.е. 30 мин без спаривания). Затем самку 1 снова поместили за сетку (образец 11), и через 15 мин сетка была убрана (образец 12). После 15 мин без спаривания самку 2 поместили за сетку (образец 13). Образцы 14–17 соответствуют спариванию с самкой 2. Количество попыток спаривания, интромиссий или эякуляций, связанных с каждым 15-минутным образцом микродиализа, показано на нижней гистограмме . Нейрохимические данные выражены в процентах от исходных концентраций. Изменения в оттоке NAC DA ( закрытые квадраты ), DOPAC ( закрытые круги ) и HVA ( открытые круги ) представлены в виде линейных графиков . Были проведены следующие сравнения: исходный образец 1 против образцов 2–10; новый исходный образец 10 против образцов 11 и 12; новый исходный образец 12 против образцов 13–17 (* p < 0.05; ** p < 0.01). Были проведены независимые t- тесты между исходными значениями (образцы 1, 10 и 12). Для значимых различий по сравнению с первым исходным значением (образец 1) † p < 0.05.
Для нейрохимических данных, связанных с самкой 1 (образцы 1–12) и самкой 2 (образцы 12–17), были проведены отдельные однофакторные дисперсионные анализы с повторными измерениями. Априорные сравнения проводились с использованием множественного сравнительного теста Данна ( t-критерий Бонферрони ). Были проведены следующие три основных сравнения: (1) исходный базовый уровень (образец 1) по сравнению с образцами 2–10 (первое воздействие самки 1), (2) второй базовый уровень (образец 10) по сравнению с образцами 11 и 12 (повторное воздействие самки 1) и (3) третий базовый уровень (образец 12) по сравнению с образцами 13–17 (воздействие самки 2).
Наблюдалось значительное общее изменение высвобождения дофамина в ответ на присутствие самки 1 [ F (11,44) = 8.48; p < 0.001] и самки 2 [ F (5,20) = 2.83; p < 0.05]. Значительное увеличение высвобождения дофамина было обнаружено, когда самка 1 находилась за сеткой (+44%, p < 0.05; образец 2). Во время спаривания концентрация дофамина еще больше увеличивалась, достигая максимального значения (+95%; p < 0.01) во время первого акта спаривания (образец 3). Концентрация дофамина оставалась повышенной на протяжении всего спаривания и возвращалась к исходному уровню только в течение 30 минут, когда не происходило спаривания (образцы 9 и 10). Ни повторное введение самки 1 за сетку (образец 11), ни возможность физического взаимодействия, но без спаривания (образец 12), не повышали концентрацию дофамина относительно второго исходного значения (образец 10). Присутствие самки 2 за экраном (образец 13) привело к небольшому увеличению высвобождения дофамина (12%) по сравнению с третьим базовым значением (образец 12), которое не достигло статистической значимости. Возобновление спаривания с самкой 2 привело к значительному увеличению (34%) ( p < 0.05) высвобождения дофамина во время первого образца спаривания (образец 14). Хотя слабое копулятивное поведение сохранялось в течение следующих трех образцов, концентрация дофамина снизилась до базовых значений (образцы 15–17). Независимые t- тесты, проведенные среди «базовых» образцов (т.е. 1, 10 и 12), показали, что эти значения существенно не различались.
У трех крыс, которые возобновили совокупление, когда женский 1 был повторно введен, концентрации NAC DA увеличивались, когда женщина за пределами 1 присутствовала за экраном (диапазон, 25-47%) и во время совокупления (диапазон, 13-37%) по сравнению с образцом только до реинтродукции самки. Однако это увеличение произошло только тогда, когда сексуальное поведение было энергичным и привело к эякуляции.
В ответ на присутствие самки 1 были обнаружены значительные общие изменения концентраций ДОПАК [ F (11,44) = 9.57; p < 0.001] и ГВС [ F (11,44) = 12.47; p < 0,001], но не самки 2. Концентрации метаболитов незначительно увеличились (+15% в обоих случаях) во время появления самки 1 за ширмой (образец 2), но это увеличение не было статистически значимым. Однако наблюдалось значительное увеличение концентраций ДОПАК и ГВС во время копуляции (образцы 3–8), достигающее максимальных значений (+80 и +86% соответственно; p < 001) через 60 мин (образец 6 в обоих случаях). Хотя концентрации метаболитов снизились в период половой неактивности в конце контакта с самкой 1 (образцы 9 и 10), они все еще оставались повышенными по сравнению с исходным уровнем ( p < 0.05 в обоих случаях). Повторное введение самки 1 за сетку (образец 11), доступ к самке 1 после снятия сетки (образец 12) и введение самки 2 (образец 13) не привели к каким-либо изменениям концентрации метаболитов. Незначительное, но статистически несущественное увеличение концентрации ДОПАК и ГВС (+23% в обоих случаях) относительно исходного уровня (образец 12) соответствовало первому акту спаривания с самкой 2 (образец 14). Однако это увеличение было кратковременным и снизилось до исходных значений для оставшихся трех образцов (15–17). Независимые t- тесты, проведенные среди «исходных» образцов (т.е. 1, 10 и 12), показали, что второе и третье исходные значения (образцы 10 и 12 соответственно), хотя и не отличались друг от друга, оставались значительно повышенными по сравнению с первым исходным образцом для ДОПАК и ГВС ( p < 0.05 в обоих случаях).
гистология
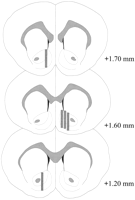
Зонды микродиализа располагались в НАК (рис. 2 ) в диапазоне от +1.20 до +1.70 мм от брегмы (плоский череп). Наблюдалась также вариабельность в медиолатеральной плоскости; данные отражают отбор проб из субзон оболочки и ядра НАК.
Просмотреть увеличенную версию:
Рис. 2.
Расположение микродиализных зондов в прилежащем ядре головного мозга самцов крыс, использованных в эксперименте по изучению эффекта Кулиджа. Заштрихованные прямоугольники соответствуют открытой области мембраны микродиализных зондов. Серийные корональные срезы мозга были перерисованы по материалам работы Паксиноса и Уотсона (1986).
ОБСУЖДЕНИЕ
В соответствии с более ранними сообщениями, настоящие результаты демонстрируют усиление мезолимбической дофаминовой трансмиссии, связанной с аппетитивными и консумматорными компонентами полового поведения самцов крыс, оцененными с помощью микродиализа in vivo ( Mas et al., 1990 ; Pfaus et al., 1990 ; Pleim et al., 1990 ; Damsma et al., 1992 ; Wenkstern et al., 1993 ; Fumero et al., 1994 ; Mas et al., 1995a , b , d ). Кроме того, эти результаты предоставляют нейрохимический коррелят полового насыщения и последующего возобновления копуляции в ответ на появление новой восприимчивой самки (эффект Кулиджа). Представленные данные позволяют предположить, что стимулирующие свойства новой восприимчивой самки могут способствовать усилению передачи NAC DA у половозрелого самца крысы, что, в свою очередь, может быть связано с возобновлением полового поведения. Это впервые проявляется в небольшом увеличении NAC DA при появлении новой самки за экраном и наиболее убедительно демонстрируется как более выраженное увеличение во время повторного спаривания с самкой 2 (рис. 1 ).
Присутствие первой восприимчивой самки за сеткой привело к значительному увеличению высвобождения дофамина из прилежащего ядра (44% от исходного уровня), аналогичному по величине тому, что было отмечено в предыдущих экспериментах с использованием аналогичной схемы (30%, Pfaus et al., 1990 ; 35%, Damsma et al., 1992 ). В соответствии с этими исследованиями также наблюдалось дальнейшее усиление высвобождения дофамина из прилежащего ядра во время копуляции (до >95% выше исходного уровня в настоящем эксперименте). Хотя мы можем рассматривать поведение, направленное на удовлетворение потребностей, как связанное с усиленным высвобождением дофамина из прилежащего ядра ( Wenkstern et al., 1993 ; Wilson et al., 1995 ), важно рассматривать термины «желательное» и «удовлетворение потребностей» в контексте полового поведения. В то время как фаза, в которой самка присутствует за сеткой, является исключительно аппетитивной или подготовительной, поведение во время фазы копуляции нельзя считать чисто удовлетворяющим. Поскольку термин «аппетитивное» может использоваться для описания всех видов поведения, ведущих к завершению мотивированного поведения (копуляции), основное поведение, которое самец демонстрирует в активной «консумматической» фазе, лучше всего описывается как апетитивное; самец тратит большую часть своего времени и усилий на преследование самки для копуляции. В этом отношении мы можем соотнести максимальную передачу дофамина в прилежащем ядре с консумматическими, а также интенсивными апетитивными компонентами полового поведения самцов крыс.
Доступ ко второй, новой самке привел к возобновлению спаривания у всех испытуемых. Предыдущие исследования показали, что большинство крыс, которым позволяли спариваться до насыщения, используя аналогичный поведенческий протокол, как в настоящем эксперименте, не возобновляли спаривание при тестировании через 24 часа ( Бич и Джордан, 1956 ). Вероятно, присутствие новых стимульных свойств самки 2, которые могли включать обонятельные, а также зрительные и слуховые сигналы, привело к возобновлению спаривания. Интересный вопрос, на который еще предстоит ответить, заключается в том, каким механизмом самец крысы отличает новую самку от самки, с которой он недавно спаривался. Местом действия этого механизма может быть основная обонятельная система. Сообщалось, что целостность этой системы имеет важное значение для эффекта Кулиджа у хомяков ( Джонстон и Расмуссен, 1984 ). Однако вомероназально-дополнительная обонятельная система, в которой недавно у мышей был описан процесс феромональной памяти ( Kaba et al., 1994 ), также является основным кандидатом. В этом отношении примечательно, что увеличение передачи NAC DA было измерено с помощью вольтамметрии in vivo у самцов крыс, которым предоставляли подстилку, подвергавшуюся воздействию самок крыс в период эструса ( Louillot et al., 1991 ; Mitchell and Gratton, 1992 ). Кроме того, применение K + непосредственно к вомероназальному нервному слою дополнительной обонятельной луковицы, а также к самой дополнительной обонятельной луковице, было достаточным для увеличения передачи NAC DA ( Mitchell and Gratton, 1992 ).
Первый 15 мин бой со спариванием с женским 2 был связан со значительным увеличением NAC DA. В отличие от женского 1, взаимодействие с самкой 2 не приводило к увеличению NAC DA той же величины во время либо аппетитных (12%), либо завершающих (34%) фаз. Однако эти небольшие увеличения в NAC DA хорошо коррелируют с пониженным уровнем сексуального поведения, проявляемым с женским 2 по сравнению с женским 1. Концентрации метаболитов оставались повышенными в течение фазы насыщения, в результате чего были получены новые исходные концентрации (образцы 10 и 12), которые были значительно увеличены по сравнению с исходным исходным значением (образец 1).
Временная задержка в увеличении концентраций ДОПАК и ГВС во время копуляции согласуется с их образованием в качестве метаболитов исходного соединения, дофамина. Было высказано предположение, что концентрации метаболитов, определяемые методом микродиализа, по крайней мере во время естественного поведения, не обусловленного фармакологическими факторами, являются полезным показателем нейронной активности ( Damsma et al., 1992 ; Fumero et al., 1994 ). Тот факт, что концентрации метаболитов оставались повышенными даже в периоды половой неактивности в этом эксперименте, когда концентрации дофамина вернулись к исходным значениям, ставит под сомнение это предположение.
Постоянное повышение концентрации метаболитов DA, наблюдаемое в этом эксперименте, отражает средний профиль преоптической области (mPOA) метаболитов DA, наблюдаемый у крыс, в первый день после того, как они были объединены с насыщением (Mas et al., 1995a,b). Устойчивые повышения концентрации DOPAC и HVA в NAC или mPOA не всегда наблюдаются, когда период спаривания имеет фиксированную продолжительность, намного меньшую времени, необходимого для достижения насыщения. Например, во многих исследованиях показано, что концентрации ДОПАК были увеличены и оставались повышенными во время копуляции, но снизились до исходных значений вскоре после удаления самки (Pfaus et al., 1990; Pleim и др., 1990; Damsma и др., 1992;Халл и др., 1993; Wenkstern et al., 1993; Халл и др., 1995). В исследовании Mas et al. (1995b), базальные внеклеточные концентрации ДОПАК и HVA в mPOA оставались повышенными в течение 4 последовательных дней, соответствующих периоду половой бездеятельности. К четвертому дню, незадолго до того, как животные возобновили совокупление, базальные концентрации метаболитов были близки к значениям превалирования. Авторы сравнивали картину нейрохимических изменений с теми, которые наблюдались после введения блокаторов DA-рецепторов (Zetterström et al., 1984; Императо и ДиЧиара, 1985) и предположили, что состояние сексуальной бездеятельности может быть опосредовано высвобождением пролактина, которое может выступать в качестве «эндогенного нейролептика» (Mas et al., 1995a,b,d). Понятно, что нейролептическое введение сопровождается увеличением концентрации внеклеточного метаболита и оттока DA (Zetterström et al., 1984; Императо и ДиЧиара, 1985). К несчастью, Mas et al. (1995a,b) не смогли обнаружить концентрации mPOA DA. В настоящем исследовании концентрации DA в NAC возвращались к значениям прекопуляции, тогда как концентрации DOPAC и HVA оставались повышенными. Эта картина несовместима с ролью эндогенного нейролептика, действующего в НАК, для индукции половой сытости.
Учитывая участие мезолимбических дофаминовых нейронов в мотивированном поведении ( Фибигер и Филлипс, 1986 ; Блэкберн и др., 1992 ; Каливас и др., 1993 ; ЛеМойл, 1995 ) и их чувствительность к новым стимулам окружающей среды ( Фабре и др., 1983 ; Шульц, 1992 ; Миренович и Шульц, 1994 ), наблюдаемое увеличение внеклеточных концентраций дофамина в прилежащем ядре в ответ на появление новой самки согласуется с гипотезой о том, что активность в этой дофаминовой системе важна для возобновления полового поведения. Кроме того, сообщения об увеличении передачи дофамина ( Hull et al., 1993 , 1995 ; Mas et al., 1995b ; Sato et al., 1995 ) и нейронной активности ( Shimura et al., 1994 ) в медиальной преоптической области (mPOA) самцов крыс во время полового поведения, свидетельствующие о том, что эта структура также может способствовать возобновлению копуляции, характерному для эффекта Кулиджа.
В соответствии с общей ролью мезолимбической дофаминовой системы в мотивированном поведении, хорошо известно, что внеклеточные концентрации дофамина также повышаются до, во время и сразу после приема пищи, возвращаясь к исходным значениям примерно через 30 минут ( Wilson et al., 1995 ). Хорошо известно, что чувство насыщения, вызываемое пищей, зависит от ее сенсорных свойств. Люди и животные отказываются от пищи, которой их кормили до насыщения, и употребляют другую пищу, которую они не ели ( Rolls, 1986 ). Это поднимает вопрос о том, будет ли внеклеточный отток дофамина в прилежащем ядре избирательно увеличиваться при предъявлении нового типа пищи, но не при употреблении пищи, недавно съеденной до насыщения, аналогично тому, что описано в настоящем исследовании в контексте сексуальной мотивации. Если эта общая взаимосвязь между сенсорными свойствами естественных вознаграждений, насыщением и мезолимбической передачей дофамина подтвердится, это будет означать критическую роль этой нейронной системы в регуляции мотивационных процессов, нарушение которых может привести к серьезным расстройствам пищевого поведения и сексуальной функции.
Ссылки
- ↵
- Пляж FA,
- Джордан Л
(1956) Сексуальное истощение и восстановление у самцов крысы. QJ Exp Psychol 8: 121-133.
- ↵
- Бермант G,
- Lott DF,
- Андерсон L
(1966) Временные характеристики эффекта Кулиджа в копулятивном поведении у мужчин. J Comp Physiol Psychiatry 65: 447-452.
- ↵
- Блэкберн JR,
- Pfaus JG,
- Phillips AG
(1992) Допамин функционирует в аппетитном и защищенном поведении. Prog Neurobiol 39: 247-279.
- ↵
- Дамсма G,
- Pfaus JG,
- Wenkstern D,
- Phillips AG,
- Fibiger HC
(1992) Сексуальное поведение увеличивает передачу дофамина в ядре accumbens и полосатое тело самцов крыс: сравнение с новизной и локомоцией. Behav Neurosci 106: 181-191.
- ↵
- Fabre M,
- Rolls ET,
- Ashton JP,
- Уильямс G
(1983) Активность нейронов в брюшной тегментальной области обезьяны. Behav Brain Res 9: 213-235.
- ↵
- Fibiger HC,
- Phillips AG
(1986) Вознаграждение, мотивация, познание: психобиология мезотелэнцефалических систем дофамина. в справочнике по физиологии: нервная система IV, eds Bloom FE, Geiger SD (American Physiology Society, Bethesda, MD), pp 647-675.
- ↵
- Fiorino DF,
- Coury AG,
- Fibiger HC,
- Phillips AG
(1993). Электрическая стимуляция участков вознаграждения в брюшной тегментальной области увеличивает передачу дофамина в ядре у крыс крысы. Behav Brain Res 55: 131-141.
- ↵
- Фишер А
(1962) Влияние вариации раздражителей на сексуальное насыщение у самцов крыс. J Comp Physiol Psychiatry 55: 614-620.
- ↵
- Фаулер Н,
- Whalen RE
(1961). Вариация стимула и сексуального поведения у самцов крысы. J Comp Physiol Psychiatry 54: 68-71.
- ↵
- Fumero B,
- Фернандес-Вера JR,
- Gonzalez-Mora JL,
- Mas M
(1994) Изменения в обороте моноамина в областях переднего мозга, связанных с мужским сексуальным поведением: исследование микродиализа. Brain Res 662: 233-239.
- ↵
- Холмс Г.М.,
- Холмс Д.Г.,
- Sachs BD
(1987) Система сбора данных на базе IBM на ПК для регистрации сексуального поведения грызунов и для записи общего события. Физиол Бехав 44: 825-828.
- ↵
- Корпус EM,
- Eaton RC,
- Моисей J,
- Lorrain DS
(1993) Сопущение увеличивает активность допамина в медиальной преоптической области самцов крыс. Life Sci 52: 935-940.
- ↵
- Корпус EM,
- Jianfang D,
- Lorrain DS,
- Матушевич L
(1995) Внеклеточный допамин в медиальной преоптической области: последствия для сексуальной мотивации и гормонального контроля копуляции. J Neurosci 15: 7465-7471.
- ↵
- Императо А,
- DiChiara G
(1985) Вывод и метаболизм допамина у крыс-крыс после системных нейролептиков, изучаемых транс-полосатым диализом. J Neurosci 5: 297-306.
- ↵
- Johnston RE,
- Расмуссен К
(1984) Индивидуальное распознавание самцов хомяков мужчинами: роль химических сигналов и обонятельных и вомероназальных систем. Физиол Бехав 33: 95-104.
- ↵
- Каба Х,
- Хаяси Y,
- Higuchi T,
- Наканиши S
(1994) Индукция обонятельной памяти путем активации метаботропного рецептора глутамата. Наука 265: 262-264.
- ↵
- Каливас П.В.,
- Сорг Б.А.,
- Крючки MS
(1993) Фармакология и нейронная схема сенсибилизации к психостимуляторам. Behav Pharmacol 4: 315-334.
- ↵
- LeMoal M
(1995) Мезокортиколибденовые дофаминергические нейроны. Функциональные и регуляторные роли. в психофармакологии: четвертое поколение прогресса, eds Bloom FE, Kupfer DJ (Raven, New York), pp 283-294.
- ↵
- Louillot A,
- Gonzalez-Mora JL,
- Гуадалупе Т,
- Mas M
(1991) Обонятельные раздражители, связанные с сексом, вызывают селективное увеличение высвобождения дофамина в ядре прикрытия самцов крыс. Brain Res 553: 313-317.
- ↵
- Mas M,
- Gonzalez-Mora JL,
- Louillot A,
- Единственный C,
- Guadalupe T
(1990) Повышенное выделение дофамина в ядре прикуса копулятивных самцов крыс, о чем свидетельствует вольтамперометрия in vivo. Neurosci Lett 110: 303-308.
- ↵
- Mas M,
- Fumero B,
- Фернандес-Вера JR,
- Гонсалес-Мора JL
(1995a) Нейрохимические корреляции сексуального истощения и выздоровления, оцениваемые микродиализом in vivo. Brain Res 675: 13-19.
- ↵
- Mas M,
- Fumero B,
- Гонсалес-Мора JL
(1995b) Вольтамперометрический и микродиализный мониторинг высвобождения нейротрансмиттера мозга моноаминов во время социосексуальных взаимодействий. Behav Brain Res 71: 69-79.
- ↵
- Mas M,
- Fumero B,
- Перес-Родригес I
(1995c) Индукция спаривания по апоморфину у крыс, зараженных половым путем. Eur J Pharmacol 280: 331-334.
- ↵
- Mas M,
- Fumero B,
- Перес-Родригес I,
- Гонсалес-Мора JL
(1995d) Нейрохимия половой сытости. Экспериментальная модель подавленного желания. в фармакологии сексуальной функции и дисфункции, ed Bancroft J (Raven, New York), pp 115-126.
- ↵
- Mirenowicz J,
- Шульц W
(1994) Важность непредсказуемости для ответных ответов в дофаминергических нейронах приматов. J Neurophysiol 72: 1024-1027.
- ↵
- Mitchell JB,
- Gratton A
(1992) высвобождение мезолимбического дофамина, вызванное активацией вспомогательной обонятельной системы: высокоскоростное хрономамперометрическое исследование. Neurosci Lett 140: 81-84.
- ↵
- Paxinos G,
- Watson C
(1986) мозг крысы в стереотаксических координатах (2nd ed). (Академический, Сан-Диего).
- ↵
- Pfaus JG,
- Дамсма G,
- Номикос Г.Г.,
- Wenkstern D,
- Blaha CD,
- Phillips AG,
- Fibiger HC
(1990) Сексуальное поведение улучшает центральную передачу допамина у самцов крысы. Brain Res 530: 345-348.
- ↵
- Pfaus JG,
- Everitt BJ
(1995) Психофармакология сексуального поведения. в психофармакологии: четвертое поколение прогресса, eds Bloom FE, Kupfer DJ (Raven, New York), pp 743-758.
- ↵
- Pfaus JG,
- Горзалка Б.Б.
(1987) Опиоиды и сексуальное поведение. Neurosci Biobehav Rev 11: 1-34.
- ↵
- Phillips AG,
- Blaha CD,
- Pfaus JG,
- Блэкберн JR
(1992) Нейробиологические корреляции положительных эмоциональных состояний: допамин, ожидание и награда. в Международном обзоре исследований эмоций, редактор Strongman (Wiley, New York), pp 31-50.
- ↵
- Pleim ET,
- Маточик Ю.А.,
- Barfield RJ,
- Ауэрбах С.Б.
(1990). Соотношение высвобождения дофамина в ядре приспосабливается с мужским сексуальным поведением у крыс. Brain Res 524: 160-163.
- ↵
- Родригес-Манцо G,
- Фернандес-Гуасти
(1994) Сторнирование сексуального истощения серотонинергическими и норадренергическими средствами. Behav Brain Res 62: 127-134.
- ↵
- Родригес-Манцо G,
- Фернандес-Гуасти
(1995a) Участие центральной норадренергической системы в восстановлении копулятивного поведения сексуально истощенных крыс йохимбином, налоксоном и 8-OH-DPAT. Brain Res Bull 38: 399-404.
- ↵
- Родригес-Манцо G,
- Фернандес-Гуасти
(1995b) Опиоидные антагонисты и феномен сексуального насыщения. Psychopharmacol 122: 131-136.
- ↵
- Rolls BJ
(1986) Сенсорно-специфическое насыщение. Nutr Rev 44: 93-101.
- ↵
- Salamone JD
(1996) Поведенческая нейрохимия мотивации: методологические и концептуальные проблемы в исследованиях динамической активности ядра допэмина. Методы J Neurosci 64: 137-149.
- ↵
- Сато Y,
- Wada H,
- Хорита Х,
- Suzuki N,
- Шибуя А,
- Adachi H,
- Като Р,
- Tsukamoto T,
- Кумамото Y
(1995) высвобождение дофамина в медиальной преоптической области при мужском копулятивном поведении у крыс. Brain Res 692: 66-70.
- ↵
- Шульц W
(1992) Активность дофаминовых нейронов в ведении приматов. Семин Нейроси 4: 129-138.
- ↵
- Shimura T,
- Ямамото Т,
- Симокочи М
(1994) Медиальная преоптическая область вовлечена как в сексуальное возбуждение, так и в работу у самцов крыс: переоценка активности нейронов у свободно движущихся животных. Brain Res 640: 215-222.
- ↵
- Wenkstern D,
- Pfaus JG,
- Fibiger HC
(1993). Передача допамина увеличивается в ядре прикрытия самцов крыс во время их первого контакта с сексуально восприимчивыми самками крыс. Brain Res 618: 41-46.
- ↵
- Wilson C,
- Номикос Г.Г.,
- Collu M,
- Fibiger HC
(1995) Допаминергические корреляты мотивированного поведения: важность привода. J Neurosci 15: 5169-5178.
- ↵
- Wilson JR,
- Kahn RE,
- Пляж FA
(1963) Модификация в сексуальном поведении самцов крыс, вызванных изменением стимула самки. J Comp Physiol Psychiatry 56: 636-644.
- ↵
- Zetterström T,
- Sharp T,
- Ungerstedt U
(1984) Влияние нейролептических препаратов на освобождение полосатого дофамина и метаболизм у бодрствующей крысы, изучаемой внутримозговым диализом. Eur J Pharmacol 106: 27-37.
Статьи, ссылающиеся на эту статью
-
Эндогенная опиоид-индуцированная нейропластика дофаминергических нейронов в брюшной тегментальной области влияет на естественное и опиатное вознаграждение Журнал Neuroscience, 25 Июнь 2014, 34 (26): 8825-8836
-
Дисбаланс в чувствительности к различным видам наград в патологической азартной игре Мозг, 1 Август 2013, 136 (8): 2527-2538
-
Закон о естественных и лекарственных вознаграждениях по общим механизмам нейронной пластичности с {Delta} FosB в качестве ключевого посредника Журнал Neuroscience, 20 Февраль 2013, 33 (8): 3434-3442
-
Нейрональные реакции в оболочке Nucleus Accumbens во время сексуального поведения у самцов крыс Журнал Neuroscience, 1 Февраль 2012, 32 (5): 1672-1686
-
Романтическая любовь: мозговая система млекопитающих для выбора Философские транзакции Королевского общества B: Биологические науки, 29 Декабрь 2006, 361 (1476): 2173-2186
-
Гедонические горячие точки в мозге Neuroscientist, 1 Декабрь 2006, 12 (6): 500-511
-
Модуляция центральным и базолатеральным амигдаларными ядрами допаминергических коррелятов кормления в сыворотке в ядрах крыс и медиальной префронтальной коре Журнал Neuroscience, 15 Декабрь 2002, 22 (24): 10958-10965
-
Частота допамин-концентрационных переходных процессов увеличивается в дорсальном и вентральном стриатуме самцов крыс во время введения конспецифических Журнал Neuroscience, 1 Декабрь 2002, 22 (23): 10477-10486
-
Книжное обозрение: Динамика внеклеточного допамина при острых и хронических действиях кокаина Neuroscientist, 1 Август 2002, 8 (4): 315-322
-
Дифференциальное участие рецепторов NMDA, AMPA / Kainate и допамина в ядре ядра ядра в приобретении и эффективности поведения Pavlovian Approach Журнал Neuroscience, 1 Декабрь 2001, 21 (23): 9471-9477
-
Контроль поведения кокаина, вызванного лекарственными стимулами у крыс: воздействие на восстановление потушенных уровней ответа на прием и внеклеточный уровень допамина в миндалине и ядре PNAS, 11 Апрель 2000, 97 (8): 4321-4326
-
Содействие сексуальному поведению и усиленному эффекту допамина в ядрах самцов крыс после индуцированной D-амфетамином поведенческой сенсибилизации Журнал Neuroscience, 1 Январь 1999, 19 (1): 456-463
-
НЕЙРОНУКА: Привлечение внимания мозга Наука, 3 Октябрь 1997, 278 (5335): 35-37
-
Дофаминергические корреляты сенсорной специфичности в медиальной префронтальной коре и ядрах крысы Журнал Neuroscience, 1 Октябрь 1999, 19 (19): RC29