Dialógy klinickej neurovedy. 2013 december;15(4):431-43.
abstraktné
Napriek dôležitosti mnohých psychosociálnych faktorov, drogová závislosť vo svojej podstate zahŕňa biologický proces: schopnosť opakovaného vystavenia sa droge vyvolať zmeny v zraniteľnom mozgu, ktoré vedú k kompulzívnemu vyhľadávaniu a užívaniu drog a strate kontroly nad užívaním drog, čo definuje stav závislosti. V tejto štúdii sa zaoberáme typmi molekulárnych a bunkových adaptácií, ktoré sa vyskytujú v špecifických oblastiach mozgu a sprostredkovávajú behaviorálne abnormality spojené so závislosťou. Patria sem zmeny v génovej expresii dosiahnuté čiastočne prostredníctvom epigenetických mechanizmov, plasticita v neurofyziologickom fungovaní neurónov a synapsií a súvisiaca plasticita v neuronálnej a synaptickej morfológii sprostredkovaná čiastočne zmenenou signalizáciou neurotrofických faktorov. Každý z týchto typov modifikácií vyvolaných drogami možno považovať za formu „bunkovej alebo molekulárnej pamäte“. Navyše je pozoruhodné, že väčšina foriem plasticity súvisiacich so závislosťou je veľmi podobná typom plasticity, ktoré sa spájajú s klasickejšími formami „behaviorálnej pamäte“, čo možno odráža konečný repertoár adaptačných mechanizmov dostupných pre neuróny, keď čelia environmentálnym výzvam. Nakoniec, molekulárne a bunkové adaptácie súvisiace so závislosťou zahŕňajú väčšinu tých istých oblastí mozgu, ktoré sprostredkúvajú klasickejšie formy pamäte, čo je v súlade s názorom, že abnormálne spomienky sú dôležitými faktormi pri vzniku syndrómov závislosti. Cieľom týchto štúdií, ktorých cieľom je objasniť molekulárny a bunkový základ drogovej závislosti, je nakoniec vyvinúť biologicky založené diagnostické testy, ako aj účinnejšie liečebné postupy pre poruchy závislosti.
úvod
Drogová závislosť, ktorú možno definovať ako kompulzívne vyhľadávanie a užívanie drog napriek hrozným následkom alebo strate kontroly nad užívaním drog, je spôsobená dlhodobými zmenami vyvolanými drogami, ktoré sa vyskytujú v určitých oblastiach mozgu. 1 Len niektorí jedinci však podľahnú závislosti tvárou v tvár opakovanej expozícii drogám, zatiaľ čo iní sú schopní užívať drogu príležitostne a uniknúť syndrómu závislosti. Genetické faktory tvoria približne 50 % tejto individuálnej variability v zraniteľnosti voči závislosti a tento stupeň dedičnosti platí pre všetky hlavné triedy návykových drog vrátane stimulantov, opiátov, alkoholu, nikotínu a kanabinoidov . 2 Zatiaľ nebolo možné identifikovať väčšinu génov, ktoré tvoria toto genetické riziko, pravdepodobne kvôli zapojeniu možno stoviek genetických variácií, ktoré sa u jedného jedinca sčítavajú a spôsobujú zraniteľnosť voči závislosti (alebo u iných jedincov rezistenciu).
Zvyšných 50 % rizika závislosti je spôsobených množstvom environmentálnych faktorov, ktoré sa vyskytujú počas celého života a interagujú s genetickým zložením jednotlivca, čím ho vo väčšej či menšej miere robia zraniteľným voči závislosti. So závislosťou sa spája niekoľko typov environmentálnych faktorov vrátane psychosociálneho stresu, ale zďaleka najsilnejším faktorom je vystavenie sa samotnej droge. Ukázalo sa, že niektoré „vstupné“ drogy, najmä nikotín, zvyšujú zraniteľnosť voči závislosti od inej drogy.3 Okrem toho existuje stále viac dôkazov o tom, že napriek širokej škále genetických rizík závislosti v celej populácii môže vystavenie sa dostatočne vysokým dávkam drogy počas dlhého obdobia zmeniť niekoho, kto má relatívne nižšiu genetickú záťaž, na závislého.4
Za posledné dve desaťročia sa dosiahol veľký pokrok v identifikácii samostatných oblastí mozgu, ktoré sú dôležité pri sprostredkovaní syndrómu závislosti, ako aj typov zmien na molekulárnej a bunkovej úrovni, ktoré drogy v týchto oblastiach vyvolávajú a ktoré sú základom kľúčových aspektov závislosti.1 , 5 Okruh , ktorému sa venovala najväčšia pozornosť, sa označuje ako mezolimbický dopamínový systém, ktorý zahŕňa dopamínové neuróny vo ventrálnej tegmentálnej oblasti (VTA) stredného mozgu inervujúce stredné tŕňové neuróny v nucleus accumbens (NAc, časť ventrálneho striata). Tieto VTA neuróny tiež inervujú mnoho ďalších oblastí predného mozgu vrátane hipokampu, amygdaly a prefrontálneho kortexu (PFC).
Zvážiť tieto mechanizmy drogovej závislosti v tomto zväzku o pamäti má zmysel z troch prekrývajúcich sa dôvodov. 6
- Po prvé, všetky adaptácie vyvolané liekmi možno považovať za typy „molekulárnej alebo bunkovej pamäte“, pričom nervová bunka, ktorá prechádza takýmito zmenami, sa líši v dôsledku expozície lieku, a preto reaguje odlišne od tej istej drogy, na iné drogy, alebo na celý rad ďalších podnetov.
- Po druhé, je zaujímavé, že mnohí, možno väčšina z typov zmien, ktoré boli spojené so stavom závislosti (napr. zmenená transkripcia génu, epigenetika, synaptická plasticita a celistvosť buniek a neuronálna morfológia a neurotrofické mechanizmy) sú tiež zapojené do tradičných foriem „behaviorálnej pamäte“, ako je priestorová pamäť, podmieňovanie strachu a operantné podmieňovanie.
- Po tretie, medzi oblasťami mozgu postihnutými drogami zneužívania sú tie, ktoré sú kľúčovými neurálnymi substrátmi pre behaviorálnu pamäť, vrátane hippocampu, amygdaly a PFC. To sa zhoduje s narastajúcim uvedomením si, že niektoré z najdôležitejších znakov závislosti pozorované klinicky (napr. Túžba po drogách a recidíva) odrážajú abnormality v tradičných pamäťových obvodoch s dlhodobými spomienkami na skúsenosti s drogami, ktoré slúžia ako silné faktory patológie závislostí.4,7,8 Naopak, oblasti odmeny v mozgu (napr. VTA a NAc) účinne ovplyvňujú behaviorálnu pamäť.
Tento článok poskytuje prehľad hlavných typov molekulárnych a bunkových zmien, ku ktorým dochádza v niekoľkých oblastiach mozgu na zvieracích modeloch závislosti, so zameraním na nucleus accumbens, o ktorom je v súčasnosti k dispozícii najviac informácií. Dôležité je, že niektoré z týchto zmien je možné čoraz viac overiť u ľudí závislých na základe štúdií mozgov po smrti. Napriek tomu, že drogy zneužívané majú odlišné chemické štruktúry a pôsobia na odlišné proteínové ciele, je pozoruhodné, že mnohé významné adaptácie súvisiace so závislosťou sú spoločné pre mnohé a v niektorých prípadoch pre všetky drogy zneužívané a pravdepodobne prispievajú k spoločným znakom syndrómu závislosti.4,9 Naproti tomu mnohé iné adaptácie vyvolané drogami sú špecifické pre danú drogu a môžu sprostredkovať jedinečnejšie aspekty danej závislosti. Zameriavame sa tu na stimulačné a opiátové drogy zneužívané na základe závislosti, ktoré majú na zvieracích modeloch dramatickejšie účinky v porovnaní s inými drogami. Zdôrazňujeme tiež dôležité oblasti pre budúci výskum, ktoré ďalej rozšíria naše znalosti o syndrómoch závislosti a premenia tieto pokroky na vylepšené diagnostické testy a liečbu.
Transkripčné a epigenetické mechanizmy
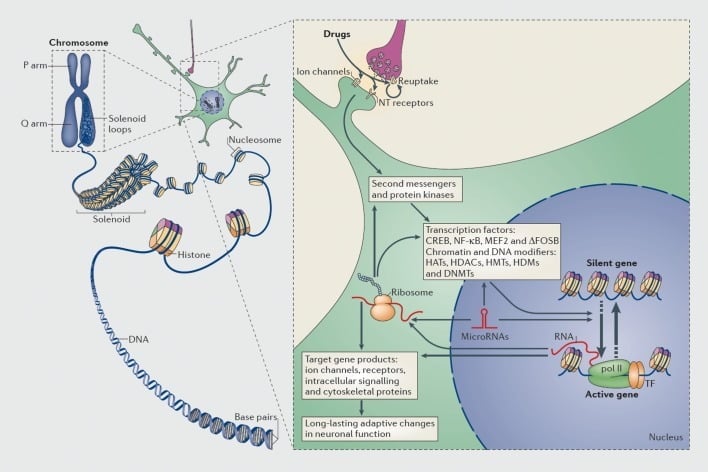
Vedomosť, že u závislých môže byť zvýšené riziko relapsu aj napriek rokom abstinencie, znamená, že závislosť zahŕňa drogami vyvolané zmeny v mozgu, ktoré môžu byť veľmi stabilné. To viedlo niekoľko skupín k tomu, aby považovali zmeny v génovej expresii za dôležitú súčasť procesu závislosti ( obrázok 1 ). V súlade s tým štúdie kandidátskych génov alebo celogenómové výskumy zahŕňajúce DNA mikročipy a v poslednej dobe RNA-seq (vysokokapacitné sekvenovanie exprimovaných RNA) identifikovali početné gény, ktorých expresia je zmenená v danej oblasti mozgu u hlodavcov a primátov a u ľudí závislých (napr. odkazy 10-17). Príklady takýchto génov sú diskutované v nasledujúcich častiach tejto recenzie.
Mechanizmy transkripčnej a epigenetickej regulácie drogami zneužívania. V eukaryotických bunkách je DNA organizovaná obalením okolo histónových oktomérov za vzniku nukleozómov, ktoré sú potom ďalej organizované a kondenzované za vzniku chromozómov (ľavá časť). Len dočasným uvoľnením zhutneného chromatínu môže byť DNA špecifického génu sprístupnená transkripčnému aparátu. Lieky zneužívania pôsobia prostredníctvom synaptických cieľov, ako sú mechanizmy spätného vychytávania, iónové kanály a receptory neurotransmiterov (NT) na zmenu intracelulárnych signálnych kaskád (pravá časť). To vedie k aktivácii alebo inhibícii transkripčných faktorov (TFs) a mnohých ďalších nukleárnych cieľov, vrátane chromatín-regulačných proteínov (znázornených silnými šípkami); podrobné mechanizmy zapojené do synaptickej regulácie proteínov regulujúcich chromatín zostávajú zle pochopené. Tieto procesy v konečnom dôsledku vedú k indukcii alebo represii konkrétnych génov, vrátane tých, ktoré sú pre nekódujúce RNA, ako sú mikroRNA; zmenená expresia niektorých z týchto génov môže ďalej regulovať transkripciu génov. Predpokladá sa, že niektoré z týchto zmien vyvolaných liečivami na úrovni chromatínu sú extrémne stabilné a tým sú základom dlhodobého správania, ktoré definuje závislosť. CREB, cyklický AMP-responzívny element viažuci element; DNMT, DNA metyltransferázy; HAT, histón acetyltransferázy; HDAC, históndeacetylázy; HDM, demetylázy histónov; HMT, histón metyltransferázy; MEF2, enhancerový faktor špecifický pre myocyt, 2; NF-kB, jadrový faktor-KB; pol II, RNA polymeráza II. Reprodukované z ref. 44: Robison AJ, Nestler EJ. Transkripčné a epigenetické mechanizmy závislosti. Nat Rev Neurosci. 2011: 12: 623-637.
Podobne sa zistilo, že mnoho typov transkripčných faktorov – proteínov, ktoré sa viažu na regulačné oblasti génov, a tým zvyšujú alebo znižujú transkripciu týchto génov – sprostredkováva dlhodobé účinky zneužívania drog na génovú expresiu v mozgu . Medzi významné príklady patrí CREB (väzbový proteín cAMP response element), ΔFosB (transkripčný faktor rodiny Fos), NFkB (nukleárny faktor kB), MEF2 (faktor zosilňujúci myocyty-2) a glukokortikoidné receptory, okrem iných. 5 , 10 , 18 – 22 Je čoraz viac možné pochopiť bunkové signálne dráhy, prostredníctvom ktorých zneužívané drogy aktivujú daný transkripčný faktor v mozgu, a kauzálne prepojiť takúto aktiváciu s cieľovými génmi tohto transkripčného faktora a so špecifickými behaviorálnymi aspektmi závislosti (pozri obrázok 1) . Tento pokrok je ilustrovaný zvážením CREB a ΔFosB, ktoré sú najlepšie študovanými transkripčnými faktormi v modeloch závislosti.
Proteín viažuci element cAMP
Aktivujú sa stimulačné a opiátové drogy CREB v niekoľkých oblastiach mozgu dôležitých pre závislosť, vrátane prominentných v NAc.23,24 Je známe, že CREB je aktivovaný v iných systémoch pomocou cAMP, Ca2+a dráhy rastového faktora,25 a zatiaľ nie je známe, ktorý z nich sprostredkováva jeho aktiváciu v NAc drogami zneužívania. Ukázalo sa, že aktivácia lieku CREB v NAc predstavuje klasický mechanizmus negatívnej spätnej väzby, pričom CREB slúži na zníženie citlivosti zvieraťa na prospešné účinky týchto liekov (tolerancia) a na sprostredkovanie negatívneho emočného stavu pri vysadení lieku (závislosť).18,26,27 Nedávno sa ukázalo, že tieto účinky vedú k zvýšeniu samoliečby liekov a relapsu, pravdepodobne prostredníctvom procesu negatívneho zosilnenia.28 Zdá sa, že tieto účinky CREB zahŕňajú obidva hlavné subtypy NAc stredných ostnatých neurónov, ktoré exprimujú prevažne D1 verzus D2 dopamínové receptory.24 IVeľký počet literatúry ukázal, že CREB, pôsobiaci v hipokampe a amygdale, je kľúčovou molekulou v behaviorálnej pamäti..29-31 Táto široká úloha v závislosti a behaviorálnej pamäti pravdepodobne odráža skutočnosť, že neuróny sú naplnené konečným počtom molekulárnych mechanizmov, s ktorými sa môže prispôsobiť neustále sa meniacemu prostrediu.
Cieľové gény pre CREB, ktoré sprostredkovávajú tento behaviorálny fenotyp, boli identifikované prostredníctvom celogenómových testov, ako aj vybranejších snáh. 10 , 18 , 32 Jedným príkladom je opioidný peptid dynorfín: stimulačná indukcia expresie dynorfínu v neurónoch NAc, sprostredkovaná prostredníctvom CREB, zvyšuje aktiváciu k opioidných receptorov na dopamínových neurónoch VTA dynorfínom, a tým potláča dopaminergný prenos do NAc a zhoršuje odmenu . 18 Ukázalo sa, že niekoľko ďalších cieľov CREB je dôležitých pre synaptickú plasticitu indukovanú liekmi, ako je uvedené nižšie. Zatiaľ čo CREB je aktivovaný aj v niekoľkých ďalších oblastiach mozgu stimulantmi a opiátmi, 23 , 24 menej je známe o behaviorálnych dôsledkoch tohto účinku a cieľových génoch, prostredníctvom ktorých k nim dochádza. Podobne je menej známe o úlohe CREB pri sprostredkovaní účinkov iných drog zneužívaných. 19
ΔFosB
Akútne vystavenie prakticky akejkoľvek droge indukuje všetky transkripčné faktory rodiny Fos v NAc a niekoľkých ďalších oblastiach mozgu. Táto indukcia je rýchla, ale aj vysoko prechodná, pričom hladiny proteínu Fos sa vracajú k normálu v priebehu 8 až 12 hodín. Unikátnym medzi týmito proteínmi rodiny Fos je ΔFosB, skrátený produkt génu FosB, ktorý sa vďaka svojej nezvyčajnej stabilite postupne akumuluje v priebehu opakovanej expozície droge a stáva sa predominantným proteínom Fos exprimovaným za týchto podmienok.22 , 33 Navyše, vďaka tejto stabilite hladiny ΔFosB pretrvávajú týždne po vysadení drogy. Takáto chronická indukcia ΔFosB bola preukázaná prakticky pre všetky drogy34 a pre väčšinu drog je selektívna pre neuróny NAc typu Dl.34 , 35 Bola preukázaná aj u ľudí závislých. 35 Veľké množstvo literatúry preukázalo, že takáto indukcia ΔFosB v neurónoch NAc typu D1 zvyšuje citlivosť zvieraťa na drogu, ako aj na prirodzené odmeny a podporuje samopodávanie drogy, pravdepodobne prostredníctvom procesu pozitívneho posilnenia (pozri odkazy 34 až 38) . Je zaujímavé, že indukcia ΔFosB drogami v NAc je dramatickejšia u dospievajúcich zvierat, v období väčšej zraniteľnosti voči závislosti , 39 a ukázalo sa, že jej indukcia nikotínom sprostredkováva zvýšenie odmeny za kokaín nikotínom, podobné vstupnej bráne . 40
Pokiaľ ide o CREB, v NAc bolo identifikovaných množstvo cieľových génov pre ΔFosB pomocou kandidátskych génov a celogenómových prístupov. 10 , 32 Zatiaľ čo CREB indukuje dynorfín, ΔFosB ho potláča, čo prispieva k pro-odmeňovacím účinkom ΔFosB . 38 Ďalším cieľom ΔFosB je cFos: keď sa ΔFosB akumuluje pri opakovanej expozícii lieku, potláča c-Fos a prispieva k molekulárnemu prepínaču, ktorým sa ΔFosB selektívne indukuje v stave chronickej liečby liekmi . 41 Ukázalo sa, že mnoho ďalších cieľov ΔFosB sprostredkováva schopnosť určitých drog zneužívaných v NAc indukovať synaptickú plasticitu v NAc a súvisiace zmeny v dendritickej arborizácii stredných ostnatých neurónov NAc, ako bude uvedené nižšie.
Funkčné dôsledky indukcie ΔFosB v iných oblastiach mozgu sú menej dobre pochopené, hoci jej indukcia v orbitofrontálnom kortexe (OFC) bola podrobnejšie študovaná. V tomto prípade ΔFosB sprostredkováva toleranciu, ktorá sa vyskytuje voči kognitívne narušujúcim účinkom kokaínu počas chronickej expozície, a táto adaptácia je spojená so zvýšeným samopodávaním kokaínu . 42 , 43
Celogenómové testy naznačili niekoľko potenciálnych cieľových génov, ktoré sprostredkovávajú tieto účinky.42 Napriek jedinečným časovým vlastnostiam ΔFosB a poznatkom, že je indukovaný v tradičných pamäťových okruhoch (napr. hipokampus), zatiaľ nedošlo k preskúmaniu úlohy ΔFosB v behaviorálnej pamäti, čo je zaujímavá téma pre budúci výskum.
Epigenetické mechanizmy
V posledných rokoch sa štúdie transkripcie posunuli o krok ďalej k epigenetike 44 (pozri obrázok 1) , ktorú možno všeobecne definovať ako zmenu v génovej expresii, ku ktorej dochádza bez zmeny v sekvencii DNA. Epigenetické mechanizmy riadia balenie DNA v bunkovom jadre prostredníctvom jej interakcií s histónmi a mnohými ďalšími typmi jadrových proteínov, ktoré spolu tvoria chromatín. Génová expresia je riadená stavom tohto balenia prostredníctvom kovalentnej modifikácie histónov, iných proteínov a samotnej DNA. Ako príklad možno uviesť, že acetylácia histónov má tendenciu podporovať aktiváciu génov, metylácia histónov môže buď podporovať aktiváciu, alebo represiu génov v závislosti od zvyšku Lys, ktorý prechádza touto modifikáciou, a metylácia DNA je vo všeobecnosti spojená s represiou génov, hoci určité variantné formy metylácie (napr. 5-hydroxymetylácia) môžu byť spojené s aktiváciou génov.
Epigenetika je atraktívny mechanizmus, pretože v iných systémoch, napríklad vo vývojovej a rakovinovej biológii, môžu byť určité epigenetické modifikácie trvalé. Z tohto dôvodu sa epigenetika skúmala v modeloch učenia a pamäte (napr. odkazy 45-48), ako aj v závislosti; 44 , 49 v oboch systémoch boli hlásené výrazné zmeny v acetylácii a metylácii histónov a v metylácii DNA. Ako jeden príklad možno uviesť histónmetyltransferázu G9a, ktorá je zapojená do pamäte 50 aj závislosti. 51 , 52 V modeloch závislosti je expresia G9a v NAc znížená v reakcii na stimulačné alebo opiátové drogy a ukázalo sa, že to zvyšuje odmeňujúce účinky týchto drog . 51 , 52 Je zaujímavé, že potlačenie G9a kokaínom je sprostredkované ΔFosB. G9a katalyzuje dimetyláciu Lys9 histónu H3 (H3K9me2), hlavného mediátora génovej represie. ChIP-chip alebo ChIP-seq (chromatínová imunoprecipitácia nasledovaná promótorovými čipmi alebo vysokokapacitným sekvenovaním) sa používa na získanie celogenómových máp génov v NAc, ktoré vykazujú zmenený H3K9me2 po expozícii stimulantom alebo opiátom. 32 , 52 , 53 Prekrytím týchto génových zoznamov s celogenómovými zoznamami zmien génovej expresie a s celogenómovými mapami mnohých iných foriem epigenetických modifikácií (napr. väzba ΔFosB, väzba CREB, iné modifikácie histónov atď.), 32 , 53 by malo byť možné identifikovať čoraz kompletnejší súbor génov, ktoré sú regulované zneužívanými drogami, a pochopiť základné epigenetické mechanizmy.
Ďalšou formou epigenetickej regulácie zapojenej do pamäte a závislosti je tvorba mikroRNA. Tieto malé, nekódujúce RNA sa viažu na komplementárne oblasti mRNA a tým potláčajú ich transláciu alebo indukujú ich degradáciu. Delécia Argonautu, proteínu kľúčového pre spracovanie miRNA, mení behaviorálne reakcie na kokaín, pričom sa pozorujú odlišné účinky pre stredne ostnaté neuróny typu D1 oproti D2.54 Ukázalo sa, že niekoľko špecifických miRNA je regulovaných expozíciou droge a následne ovplyvňuje behaviorálne reakcie na drogy (napr. odkazy 55,56). V budúcich štúdiách bude zaujímavé identifikovať ciele mRNA týchto miRNA a charakterizovať, ako ovplyvňujú proces závislosti.
Synaptická plasticita
Rovnaké všeobecné typy synaptických modifikácií na glutamatergických synapsiách, ktoré sa podieľajú na hipokampe a amygdale v behaviorálnej pamäti (pozri ďalšie články v tomto čísle), sa podobne preukázali aj v oblastiach odmeny v mozgu v modeloch závislosti a sú dôležité pri sprostredkovaní procesu závislosti.57 , 58 Takáto drogami indukovaná synaptická plasticita bola opísaná v niekoľkých oblastiach mozgu, my sa však tu zameriavame na NAc , na ktorú sa doteraz zameriavala väčšina výskumu ( obrázok 2 ).
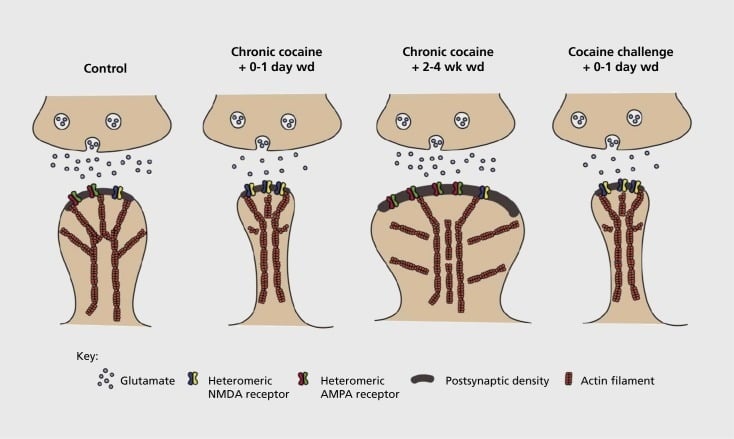
Model synaptickej a štrukturálnej plasticity súvisiacej so závislosťou v nucleus accumbens (NAc). Chronická expozícia kokaínu má za následok časovo závislú a prechodnú reorganizáciu kyseliny alfa-amino-3-hydroxy-5-metyl-4-izoxazolepropiónovej (AMPA) a receptorov glutamátu N-metyl-D-asparágovej kyseliny (NMDA) na médiu NAc synapsy ostnatého neurónu (MSN), ako aj štrukturálne zmeny v hlave chrbtice NAc MSN, ktoré korelujú s odlišnými formami synaptickej plasticity. Napríklad chronický kokaín indukuje povrchovú expresiu NMDA receptorov, tvorbu tichej synapsie a dlhodobú depresiu (LTD) v časných časových bodoch. Počas dlhšieho vysadenia (wd) sa tieto synaptické zmeny reverzujú, výsledkom čoho je zvýšená expresia povrchových AMPA receptorov, konsolidácia synapsie na hubovitý chrbticu a dlhodobá potenciácia (LTP). Tieto účinky sa opäť rýchlo vrátia po vystavení pôsobeniu stimulačnej dávky kokaínu, čo vedie k reštrukturalizácii chrbtice na tenké chrbtice a depresii synaptickej sily.
Počiatočné experimenty preukázali, že opakovaná expozícia stimulačným drogám vyvoláva stav podobný LTD (dlhodobá depresia) na glutamátergických synapsiách v NAc.59 Novšie práce však preukázali, že takáto plasticita je vysoko časovo závislá, pričom LTD sa vyskytuje skoro po poslednej expozícii kokaínu a po dlhších časových bodoch odvykania sa vyvíja do stavu podobného LTP (dlhodobá potenciácia) .60 , 61 Táto práca, ktorá sa doteraz vykonávala predovšetkým s použitím liekov podávaných skúšajúcim – na rozdiel od liekov podávaných samostatne – definovala potrebu systematickejších výskumov v modeloch samostatného podávania, ktoré sledujú formy synaptickej plasticity, ku ktorým dochádza na glutamátergických synapsiách v NAc v podrobnom časovom priebehu od získania samostatného podávania až po jeho udržanie, cez rôzne časy odvykania a zániku a v reakcii na stimuly vyvolávajúce relaps. Doterajšia práca tiež definovala niektoré molekulárne mechanizmy, ktoré prispievajú k tejto synaptickej plasticite indukovanej liekmi, vrátane transportu AMPA receptorov do synapsie, pravdepodobne čiastočne sprostredkovaného fosforyláciou určitých podjednotiek AMPA receptora CaMKII (Ca2 + /kalmodulín-dependentná proteínkináza II), ako aj zmenenou expresiou podjednotiek AMPA receptora (napr. 60,62-65, obrázky 2 a 3 ). Úloha CREB a ΔFosB bola implikovaná v týchto javoch, ako aj v súvisiacich zmenách v morfológii glutamatergických synapsií (pozri nižšie). Napríklad GluAl je cieľom CREB v NAc, kde GluA2 aj CaMKII sú cieľmi ΔFosB v tejto oblasti mozgu . 35 , 36 , 66 , 67 V budúcnosti bude dôležité prepojiť špecifické adaptácie s časovo závislými zmenami synaptickej funkcie a behaviorálnymi znakmi závislosti.
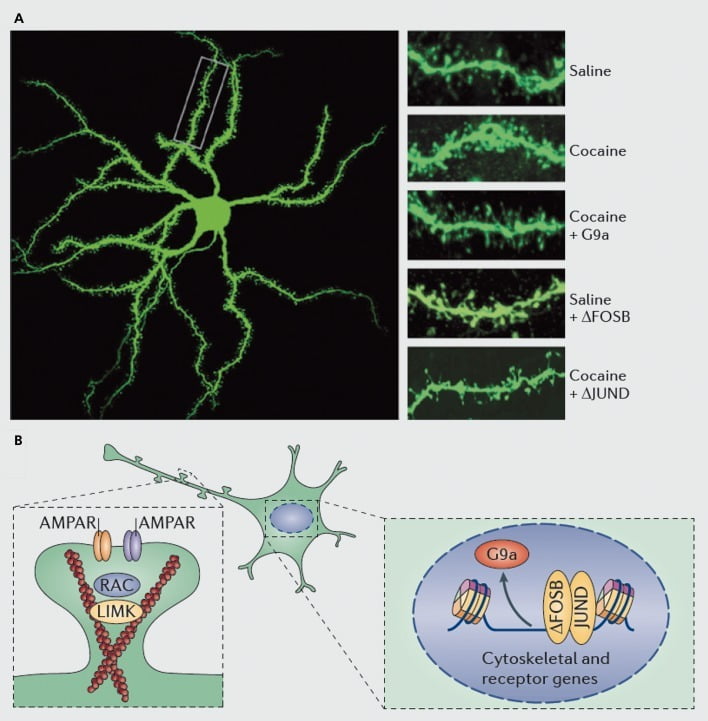
Molekulárne mechanizmy založené na indukcii kokaínu dendritických tŕňov na stredne ostnatých neurónoch nukleus accumbens (NAc). A) ukazuje zvýšenie počtu dendritických stavcov vyvolané kokaínom, ktoré môže byť blokované nadmernou vírusovou expresiou G9a alebo JunD (antagonista transkripcie sprostredkovanej AP1), alebo napodobnené nadmernou vírusovou expresiou FosB. B) Ukázalo sa, že dôležitú úlohu zohrávajú regulácia obchodovania s AMPA receptorom (AMPAR) a aktínového cytoskeletu (vľavo), ako aj regulácia transkripcie glutamátových receptorov a regulačných proteínov pre aktín (napr. Sprostredkovaná prostredníctvom ΔFosB, vpravo). pri sprostredkovaní kokaínu pri regulácii hustoty dendritickej chrbtice NAc. Kináza UMK, LIM domény; RAC, substrát C3 botulotoxínu súvisiaci s Ras.
Nové experimentálne nástroje umožňujú po prvýkrát s rastúcou presnosťou definovať, ktoré konkrétne obvody vykazujú tieto formy synaptickej plasticity a aké behaviorálne abnormality sprostredkujú. Napríklad subregióny shell a core NAc vykazujú rozdiely v synaptickej plasticite indukovanej liekmi, rovnako ako neuróny strednej tŕne typu D1 oproti D2 v rámci každej subregiónu. 60 , 63 , 64 , 67 Podobne optogenetické experimenty poskytli nový pohľad na príspevok konkrétnej formy synaptickej plasticity (napr. LTD) v špecifických populáciách glutamatergických synapsií v NAc, napríklad tých, ktoré vznikajú z mediálnej PFC oproti bazolaterálnej amygdale oproti ventrálnemu subikulu (hlavný výstup hipokampu). 68 – 70 V konečnom dôsledku bude potrebné prekryť molekulárne adaptácie vyvolané drogami v každom z týchto aferentných neurónov s adaptáciami špecifickými pre synapsie, ktoré sa vyskytujú v ich postsynaptických dendritoch, aby sa získalo úplné pochopenie toho, ako drogy zneužívané modifikujú mozgové obvody a riadia konkrétne aspekty závislého stavu. Toto úsilie si bude vyžadovať väčšie pochopenie plasticity vyvolanej drogami na inhibičných synapsiách v tých istých oblastiach mozgu, čo je oblasť, ktorej sa doteraz venovala veľmi malá pozornosť. 65
Plasticita celých buniek
Zatiaľ čo väčšina výskumov týkajúcich sa neurofyziologických zmien v neurónoch pri javoch zneužívania drog, ako aj pri učení a pamäti, sa zameriava na synaptickú plasticitu, existuje stále viac dôkazov o dôležitosti aj plasticity celých buniek. Plasticita celých buniek, označovaná aj ako homeostatická plasticita, 71 zahŕňa zmeny vo vnútornej excitabilite celej nervovej bunky spôsobom, ktorý nie je špecifický pre synapsiu. Vzhľadom na to, že určité znaky drogovej závislosti zahŕňajú zvýšenú alebo zníženú citlivosť na drogu, dáva zmysel, že zvýšená alebo znížená elektrická excitabilita určitých nervových buniek prispieva k týmto behaviorálnym adaptáciám.5
Najlepším príkladom celobunkovej plasticity voči droge je schopnosť chronických opiátov zvýšiť vnútornú excitabilitu noradrenergných neurónov locus coeruleus (LC ). 72 Táto zvýšená excitabilita je sprostredkovaná prostredníctvom CREB a jeho indukciou určitých izoforiem adenylylcyklázy, ktoré spôsobujú zvýšené spaľovanie LC neurónov, pravdepodobne prostredníctvom indukcie Na+ kanálov. 72 – 75 Táto hyperexcitabilita LC neurónov predstavuje klasický mechanizmus tolerancie a závislosti a riadi niektoré znaky a symptómy abstinenčných príznakov od opiátov. Je zaujímavé, že CREB sprostredkováva podobnú formu celobunkovej plasticity v stredne ostnatých neurónoch NAc, ktoré sú tiež hyperexcitabilné chronickým vystavením drogám prostredníctvom CREB. 76 Preto bude v budúcich výskumoch kľúčové pochopiť, ako CREB-sprostredkovaná synaptická plasticita glutamatergických synapsií na stredne ostnatých neurónoch NAc 65 , 66 súhrnne súvisí s CREB-sprostredkovanou vnútornou hyperexcitabilitou týchto neurónov 76 pri kontrole behaviorálnych znakov závislosti.
Ďalším príkladom plasticity celých buniek v modeloch závislosti je hyperexcitabilita dopamínových neurónov VTA, ku ktorej dochádza po chronickej expozícii opiátovým drogám zneužívaným v dôsledku zneužívania ( obrázok 4 ) .77 , 78 Táto adaptácia, ktorá bola spojená s morfologickými zmenami v týchto nervových bunkách (pozri ďalšiu časť), nie je sprostredkovaná CREB, ale dosahuje sa reguláciou neurotrofických signálnych kaskád, ako je opísané nižšie.

Pracovný model chronických morfínom indukovaných adaptácií v dopamínových neurónoch ventrálnej tegmentálnej oblasti (VTA). Chronický morfín znižuje veľkosť dopamínových (DA) sóm vo VTA, ale zvyšuje neuronálnu excitabilitu, zatiaľ čo prenos dopamínu do nucleus accumbens je znížený. Čistým účinkom morfínu je menej responzívna dráha odmeny, t. j. tolerancia odmeny. Zníženie regulácie signalizácie IRS2-AKT vo VTA sprostredkováva účinky chronického morfínu na veľkosť sóm a elektrickú excitabilitu; účinok na excitabilitu je sprostredkovaný zníženými prúdmi kyseliny γ-aminomaslovej (GABA)A a potlačením expresie K' kanálov . Morfínom indukovaná downregulácia aktivity mTORC2 vo VTA je kľúčová pre tieto morfínom indukované morfologické a fyziologické adaptácie, ako aj pre toleranciu odmeny. Na rozdiel od mT0RC2, chronický morfín zvyšuje aktivitu mTORCI, čo neovplyvňuje tieto morfínom indukované adaptácie. BDNF, mozgový neurotrofický faktor; IRS, substancia inzulínového receptora; mTORC, komplex mTOR; AKT, proteínkináza B Reprodukované z ref. 77
Morfologická plasticita a neurotrofické mechanizmy
Rastúci počet dôkazov, prevažne zo štúdií neurónov hipokampu a mozgovej kôry, ukazuje, že zmeny v synaptickej plasticite sú spojené s morfologickými zmenami na synapsiách. Napríklad LTD a tvorba tichých synapsií sú spojené s tvorbou tenkých alebo krátkych dendritických ostňov, zatiaľ čo LTP je spojená s väčšími ostňami v tvare hríbu. 79 , 80 Je preto zaujímavé, že oblasť zneužívania drog sa zameriava na zmeny dendritických ostňov vyvolané drogami už viac ako 15 rokov. Chronická expozícia stimulačným drogám zvyšuje hustotu dendritických ostňov stredne ostnatých neurónov NAc, čo je zmena, ktorá prevláda u neurónov typu Dl . 6 7 , 81 , 82 Indukcia ostňov sa z väčšej časti spája so senzibilizovanými behaviorálnymi reakciami na tieto drogy, hoci niektoré dôkazy sú s týmto názorom v rozpore.
Rovnako ako pri štúdiách synaptickej plasticity je však potrebná oveľa väčšia práca na systematické definovanie zmien v dendritických spinoch, ku ktorým dochádza počas samopodávania drogy, vysadenia a relapsu. Doterajšie štúdie zahŕňajúce drogy podávané skúšajúcimi aj samopodávanými pacientmi naznačujú veľmi odlišné zmeny spinov, ku ktorým dochádza v rôznych časových bodoch vysadenia a v subregiónoch škrupiny NAc oproti jadru . 83 – 86 Bude tiež dôležité definovať presné molekulárne mechanizmy, ktorými kokaín alebo iný stimulant vyvoláva tieto časovo závislé a pre typ bunky špecifické účinky. Ukázalo sa, že ΔFosB je nevyhnutný aj postačujúci na indukciu nezrelých spinov na neurónoch NAc typu Dl . 35 , 51 , 67 Takáto regulácia prebieha v súčinnosti s reguláciou kokaínom a ΔFosB niekoľkých proteínov, o ktorých je známe, že riadia reorganizáciu aktínového cytoskeletu. Ako jeden príklad možno uviesť transkripčnú reguláciu niekoľkých faktorov výmeny guanínových nukleotidov a proteínov aktivujúcich GTPázu, ktorá vedie k prechodnému zníženiu aktivity Rac1, malej GTPázy, v reakcii na každú expozíciu kokaínu, a takéto pulzatilné zníženia aktivity Rac1 sa ukázali, pomocou optogenetickej kontroly Rac1, že sprostredkovávajú indukciu nezrelých ostňov. 87 Tieto účinky Racl sa pravdepodobne vyskytujú prostredníctvom jeho kontroly kofilínu a iných regulačných proteínov aktínu, o ktorých sa tiež preukázalo, že sprostredkovávajú reguláciu rastu ostňov kokaínom. 87 , 88 Je však dôležité zdôrazniť, že toto je len jedna dráha zapojená do regulácie nezrelých ostňov kokaínom, pretože sa ukázalo, že aj niekoľko ďalších proteínov zohráva dôležitú úlohu, vrátane CDK5 (cyklín-dependentná kináza-5), CaMKII, NFkB, MEF2, CREB, G9a a DNMT3 (DNA metyltransferáza 3a), aby sme vymenovali aspoň niektoré. 20 , 21 , 35 , 51 , 67 , 89 , 90 Je zaujímavé, že regulácia niekoľkých z týchto génov kokaínom, vrátane indukcie CDK5, CaMKII a NFkB a represie G9a, je tiež sprostredkovaná prostredníctvom ΔFosB. 20 , 35 , 51 , 91
Prekvapivo, opiáty zneužívané ako drogy majú opačný účinok a znižujú hustotu dendritických tŕňov stredných tŕňových neurónov NAc.81 O behaviorálnych dôsledkoch tejto adaptácie a základných molekulárnych mechanizmoch je známe len málo. Tento jav je však prekvapujúci, keďže CREB a ΔFosB sú indukované stimulantmi aj opiátmi a oba sú zapojené do indukcie hustoty dendritických tŕňov NAc sprostredkovanej stimulantmi . To vyvoláva otázku, ako opiáty potláčajú hustotu tŕňov NAc napriek tomu, že indukujú tieto faktory.
Ďalšou hlavnou formou morfologickej plasticity pozorovanou v modeloch zneužívania drog je fyzické zníženie veľkosti bunkových sóm dopamínových neurónov VTA vyvolané chronickým podávaním opiátov . 77 , 92 , 93 Podobná adaptácia nastáva v reakcii na kanabinoidy. 94 Toto zmenšenie dopamínových neurónov VTA, ku ktorému dochádza pri samopodávaní opiátov 93 a ktoré bolo zdokumentované u ľudí závislých od heroínu vyšetrených po smrti, 77 zrejme sprostredkováva toleranciu odmeny a je spojené so zníženým uvoľňovaním dopamínu v NAc . Značné množstvo dôkazov teraz naznačuje, že toto zníženie veľkosti bunkových sóm je sprostredkované potlačením expresie neurotrofického faktora odvodeného z mozgu (BDNF) opiátmi v týchto neurónoch. Toto opiátmi vyvolané odobratie podpory BDNF a zmenšenie neurónov VTA sme priamo spojili so zníženou aktivitou signálnych kaskád BDNF v dopamínových neurónoch VTA, konkrétne so zníženou aktivitou IRS2 (substrát inzulínového receptora-2), AKT (serín-treonínkináza) a TORC2 (cieľ rapamycínu-2, ktorý je necitlivý na rapamycín). 77 , 93 Ako sme už uviedli, túto zníženú reguláciu signalizácie BDNF sme priamo spojili so zvýšenou excitabilitou, ktorú morfín v týchto neurónoch indukuje. 77 , 78 Znížená veľkosť bunkových sóm a zvýšená excitabilita sú v skutočnosti úzko prepojené, pretože indukcia jedného vedie k druhému a naopak. Táto kontrola nad excitabilitou buniek zahŕňa potlačenie K + kanálov a prúdu GABA A v týchto neurónoch.
Táto úloha BDNF pri kontrole morfínových reakcií na úrovni VTA je v kontraste s jeho veľmi odlišným zapojením do účinkov kokaínu a iných stimulantov. Stimulanty indukujú signalizáciu BDNF do NAc, čo je účinok spôsobený zvýšenou lokálnou syntézou BDNF, ako aj zvýšeným uvoľňovaním z niekoľkých aferentných oblastí. 95 Okrem toho sa ukázalo, že zvýšená signalizácia BDNF v NAc, ale nie vo VTA, podporuje behaviorálne účinky týchto liekov vrátane ich samopodávania. 95 , 96 Opačná regulácia signalizácie BDNF v dráhe VTA-NAc opiátmi oproti stimulantom zvyšuje možnosť, že takéto rozdiely sprostredkovávajú opačnú reguláciu dendritických tŕňov NAc liekmi, čo je možnosť, ktorá sa v súčasnosti skúma.
Budúce smerovanie
Vyššie uvedený príbeh podčiarkuje obrovský pokrok, ktorý sa dosiahol v chápaní molekulárnych a bunkových adaptácií, ku ktorým dochádza v oblastiach odmeňovania mozgu v reakcii na opakované vystavenie sa droge a v súvislosti s individuálnymi adaptáciami s určitými behaviorálnymi znakmi syndrómov závislosti na zvieracích modeloch. Napriek tomuto pokroku zostávajú dôležité otázky. Väčšina našich existujúcich poznatkov sa zameriava na VTA a NAc, pričom je k dispozícii oveľa menej informácií o ďalších kľúčových limbických oblastiach mozgu, ktoré sú tiež kľúčové pre drogovú závislosť. Okrem toho všetky experimentálne demonštrácie kauzálnej úlohy molekulárno-bunkovej adaptácie v správaní súvisiacom s drogami manipulovali jednotlivé adaptácie jednu po druhej. Manipulovať s mnohými adaptáciami súčasne je zjavne oveľa ťažšie, ale je to tiež nevyhnutné, pretože vieme, že drogy spôsobujú veľké množstvo rôznorodých typov zmien aj v rámci jednotlivých neurónov, ktoré sa pravdepodobne sčítavajú zložitými spôsobmi a ovplyvňujú správanie. Takýto prístup systémovej biológie bude kľúčový pre konečné prelomenie biologických základov závislosti. Nakoniec, snahy o pochopenie molekulárno-bunkových mechanizmov spomienok súvisiacich so závislosťou sa ocitajú v bode, v ktorom všetky ostatné snahy o pochopenie biologického základu behaviorálnej pamäte teraz zápasia: naša schopnosť prepojiť biologické javy s komplexnou behaviorálnou pamäťou zostáva mimoriadne náročná. Prekonanie tejto priepasti predstavuje azda najväčšiu výzvu v neurovedách.
Vybrané skratky a akronymy
- Nac
- nucleus accumbens
- CREB
- cAMP väzbový proteín viažuci element
- ΔFosB
- transkripčný faktor rodiny Fos
- VTA
- ventrálna tegmentová oblasť
- AMPA
- a-amino-3-hydroxy-5-metyl-4-izoxazolepropiónová kyselina
- LTD
- dlhodobá depresia
- LTP
- dlhodobé vystúpenie
- BDNF
- neurotrofický faktor odvodený z mozgu
- NKkB
- jadrový faktor kB
REFERENCIE