KOMENTÁRE: Ako ukazujú neskoršie štúdie, DeltaFosB je spoločný molekulárny prepínač pre závislosť od drog aj správania. Je to transkripčný faktor, čo znamená, že ovplyvňuje to, ktoré gény sú zapnuté alebo vypnuté. Ako sa uvádza inde, návykové lieky unesú iba normálne mechanizmy. Preto je hlúpe tvrdiť, že závislosti od správania nemôžu existovať.
Proc Natl Acad Sci US A. 2001 September 25; 98 (20): 11042 – 11046.
dva: 10.1073 / pnas.191352698.
Eric J. Nestler *, Michel Barrot a David W. Self
Katedra psychiatrie a Centra pre základné neurovedy, University of Texas Southwestern Medical Center, 5323 Harry Hines Boulevard, Dallas, TX 75390-9070
abstraktné
Dlhovekosť niektorých behaviorálnych abnormalít, ktoré charakterizujú drogovú závislosť, naznačuje, že regulácia expresie neurálnych génov môže byť zapojená do procesu, ktorým drogy spôsobujú stav závislosti. Stále viac dôkazov naznačuje, že transkripčný faktor ΔFosB predstavuje jeden z mechanizmov, ktorými drogy spôsobujú relatívne stabilné zmeny v mozgu, ktoré prispievajú k fenotypu závislosti. ΔFosB , člen rodiny transkripčných faktorov Fos , sa akumuluje v podskupine neurónov nucleus accumbens a dorzálneho striata (oblasti mozgu dôležité pre závislosť) po opakovanom podávaní mnohých druhov drog. Podobná akumulácia ΔFosB nastáva po kompulzívnom behu, čo naznačuje, že ΔFosB sa môže akumulovať v reakcii na mnohé typy kompulzívneho správania . Dôležité je, že ΔFosB pretrváva v neurónoch relatívne dlhý čas vďaka svojej mimoriadnej stabilite. Preto ΔFosB predstavuje molekulárny mechanizmus, ktorý by mohol iniciovať a potom udržiavať zmeny v expresii génov, ktoré pretrvávajú dlho po ukončení expozície droge . Štúdie na indukovateľných transgénnych myšiach, ktoré nadmerne exprimujú buď ΔFosB, alebo dominantný negatívny inhibítor tohto proteínu, poskytujú priamy dôkaz, že ΔFosB spôsobuje zvýšenú citlivosť na behaviorálne účinky drog zneužívaných v dôsledku zneužívania a pravdepodobne aj zvýšené vyhľadávanie drog. Táto práca podporuje názor, že ΔFosB funguje ako typ trvalého „molekulárneho prepínača“, ktorý postupne premieňa akútne reakcie na drogy na relatívne stabilné adaptácie, ktoré prispievajú k dlhodobej nervovej a behaviorálnej plasticite, ktorá je základom závislosti.
Výskum závislostí sa zameriava na pochopenie komplexných spôsobov, ktorými drogy zneužívania menia mozog, aby spôsobili abnormality správania, ktoré charakterizujú závislosť. Jedným z kritických problémov v tejto oblasti je identifikovať relatívne stabilné zmeny v mozgu vyvolané liečivom, ktoré by zodpovedali za tie abnormality správania, ktoré sú obzvlášť dlhotrvajúce. Napríklad ľudský závislý môže byť vystavený zvýšenému riziku recidívy aj po rokoch abstinencie.
Stabilita týchto behaviorálnych abnormalít viedla k domnienke, že môžu byť sprostredkované, aspoň čiastočne, zmenami v génovej expresii (1–3). Podľa tohto názoru opakované vystavenie zneužívanej droge opakovane narúša prenos na konkrétnych synapsiách v mozgu, ktoré sú na drogu citlivé. Takéto poruchy nakoniec signalizujú prostredníctvom intracelulárnych poslov kaskádovito do jadra, kde najprv iniciujú a potom udržiavajú zmeny v expresii špecifických génov. Primárnym mechanizmom, prostredníctvom ktorého signálne transdukčné dráhy ovplyvňujú génovú expresiu, je regulácia transkripčných faktorov, proteínov, ktoré sa viažu na regulačné oblasti génov a modifikujú ich transkripciu.
Jedným z cieľov výskumu závislostí preto bolo identifikovať transkripčné faktory, ktoré sú zmenené v oblastiach mozgu zapojených do závislosti po chronickom podávaní návykových látok. V poslednom desaťročí bolo identifikovaných niekoľko takýchto transkripčných faktorov (1 – 6). Tento prehľad sa zameriava na jeden konkrétny transkripčný faktor nazývaný AFosB.
Indukcia AFosB liekmi zneužívania
AFosB, kódovaný fosB génom, je členom Fos rodiny transkripčných faktorov, ktoré tiež zahŕňajú c-Fos, FosB, Fra1 a Fra2 (7). Tieto proteíny rodiny Fos heterodimerizujú s proteínmi rodiny Jun (c-Jun, JunB alebo JunD) za vzniku aktívnych transkripčných faktorov AP-1 (aktivátorový proteín-1), ktoré sa viažu na miesta AP-1 (konsenzus sekvencia: TGAC / GTCA) prítomná v promótory určitých génov na reguláciu ich transkripcie.
Tieto proteíny rodiny Fos sú indukované rýchlo a prechodne v špecifických oblastiach mozgu po akútnom podaní mnohých liekov zneužívania (Obr. 1) (8 – 11). Významnými oblasťami sú nucleus accumbens a dorzálne striatum, ktoré sú dôležitými mediátormi behaviorálnych reakcií na liečivá, najmä ich odmeňujúce a pohybovo aktivačné účinky (12, 13). Tieto proteíny sa vrátia na základné hodnoty v priebehu hodín po podaní liečiva.
Obrázok 1
Schéma znázorňujúca postupnú akumuláciu ΔFosB oproti rýchlej a prechodnej indukcii iných proteínov rodiny Fos v reakcii na drogy. (A) Autorádiogram ilustruje rozdielnu indukciu týchto rôznych proteínov akútnou stimuláciou (1 – 2 hodiny po jednorazovej expozícii droge) oproti chronickej stimulácii (1 deň po opakovanej expozícii droge). (B) Niekoľko vĺn proteínov podobných Fos [pozostávajúcich z c-Fos (izoformy 52 až 58 kDa), FosB (izoformy 46 až 50 kDa), ΔFosB (izoforma 33 kDa) a Fra1 alebo Fra2 (40 kDa)] je indukovaných v nucleus accumbens a dorzálnych striatálnych neurónoch akútnym podaním drogy. Indukované sú aj biochemicky modifikované izoformy ΔFosB (35 – 37 kDa); aj tie sú indukované (hoci na nízkych úrovniach) po akútnom podaní drogy, ale pretrvávajú v mozgu dlhší čas kvôli svojej stabilite. (C) Pri opakovanom (napr. dvakrát denne) podávaní lieku každý akútny stimul indukuje nízku hladinu stabilných izoforiem ΔFosB, čo je naznačené spodnou sadou prekrývajúcich sa čiar, ktoré označujú ΔFosB indukovaný každým akútnym stimulom. Výsledkom je postupný nárast celkových hladín ΔFosB pri opakovaných stimuloch počas chronickej liečby, čo je naznačené rastúcou stupňovitou čiarou v grafe.
Po chronickom podávaní drog sa pozorujú veľmi odlišné reakcie (obr. 1) . Biochemicky modifikované izoformy ΔFosB (molekulová hmotnosť 35 – 37 kDa) sa akumulujú v rovnakých oblastiach mozgu po opakovanej expozícii droge, zatiaľ čo všetci ostatní členovia rodiny Fos vykazujú toleranciu (t. j. zníženú indukciu v porovnaní s počiatočnou expozíciou droge). Takáto akumulácia ΔFosB bola pozorovaná pri kokaíne, morfíne, amfetamíne, alkohole, nikotíne a fencyklidíne (11, 14 – 18). Existujú dôkazy o tom, že táto indukcia je selektívna pre podskupinu stredne ostnatých neurónov obsahujúcich dynorfín/substanciu P, ktoré sa nachádzajú v týchto oblastiach mozgu (15, 17), hoci na to, aby sa to s istotou potvrdilo, je potrebný ďalší výskum. Izoformy ΔFosB s hmotnosťou 35 až 37 kDa dimerizujú prevažne s JunD a tvoria aktívny a dlhotrvajúci komplex AP-1 v týchto oblastiach mozgu (19, 20). Tieto izoformy ΔFosB sa akumulujú pri chronickej expozícii lieku kvôli ich mimoriadne dlhému polčasu rozpadu (21), a preto pretrvávajú v neurónoch najmenej niekoľko týždňov po ukončení podávania lieku. Je zaujímavé poznamenať, že tieto izoformy ΔFosB sú vysoko stabilnými produktmi bezprostredného skorého génu (fosB). Stabilita izoforiem ΔFosB poskytuje nový molekulárny mechanizmus, ktorým môžu zmeny v génovej expresii vyvolané liekmi pretrvávať aj napriek relatívne dlhým obdobiam vysadenia lieku.
Hoci nucleus accumbens hrá rozhodujúcu úlohu pri odmeňovaní účinkov zneužívania drog, predpokladá sa, že funguje normálne reguláciou reakcií na prirodzené zosilňovače, ako sú potraviny, nápoje, sex a sociálne interakcie (12, 13). V dôsledku toho existuje značný záujem o možnú úlohu tejto oblasti mozgu pri iných kompulzívnych správaniach (napr. Patologické prejedanie, hazardné hry, cvičenie atď.). Z tohto dôvodu sme skúmali, či je AFosB regulovaný na zvieracom modeli kompulzívneho chodu. Stabilné izoformy 35- až 37-kDa AFosB sú indukované selektívne v rámci nucleus accumbens u potkanov, ktoré vykazujú kompulzívne priebežné správanie.
Biochemická identita stabilných izoforiem AFosB
Ako je uvedené vyššie, izoformy AFosB, ktoré sa akumulujú po chronickom podávaní lieku so zneužívaním alebo kompulzívnym chovaním, vykazujú molekulovú hmotnosť 35-37 kDa. Môžu byť diferencované od izoformy 33-kDa AFosB, ktorá je indukovaná rýchlo, ale prechodne po jednorazovej expozícii lieku (Obr. 1) (14, 19, 22). Súčasné dôkazy naznačujú, že izoforma 33-kDa je natívna forma proteínu, ktorá sa mení tak, aby tvorila stabilnejšie produkty 35-k 37-kDa (19, 21). Avšak povaha biochemickej modifikácie, ktorá konvertuje nestabilnú izoformu 33-kDa na stabilné izoformy 35- až 37-kDa, zostala nejasná. Bolo špekulované, že fosforylácia môže byť zodpovedná (11). Napríklad indukcia AFosB je oslabená u myší, ktorým chýba DARPP-32, proteín obohatený striatálom (23, 24). Pretože DARPP-32 reguluje katalytickú aktivitu proteínovej fosfatázy-1 a proteínkinázy A (25, 26), požiadavka na tento proteín na normálnu akumuláciu stabilných izoforiem AFosB naznačuje možnú úlohu fosforylácie pri tvorbe týchto stabilných produktov.
Úloha AFosB v behaviorálnej plasticite k liekom zneužívania
Pochopenie úlohy ΔFosB v drogovej závislosti pochádza prevažne zo štúdie transgénnych myší, u ktorých je možné ΔFosB selektívne indukovať v nucleus accumbens a iných striatálnych oblastiach dospelých zvierat (27, 28). Dôležité je, že tieto myši selektívne nadmerne exprimujú ΔFosB v stredne ostnatých neurónoch obsahujúcich dynorfín/substanciu P, kde sa predpokladá, že lieky indukujú tento proteín. Behaviorálny fenotyp myší s nadmernou expresiou ΔFosB, ktorý sa v mnohých ohľadoch podobá zvieratám po chronickej expozícii drogám, je zhrnutý v tabuľke 1. Myši vykazujú zvýšené lokomotorické reakcie na kokaín po akútnom a chronickom podávaní (28). Vykazujú tiež zvýšenú citlivosť na odmeňujúce účinky kokaínu a morfínu v testoch podmieňovania miesta (11, 28) a samy si podávajú nižšie dávky kokaínu ako súrodenci z vrhu, ktorí nadmerne neexprimujú ΔFosB.‡ Naproti tomu tieto zvieratá vykazujú normálnu podmienenú lokomotorickú senzibilizáciu na kokaín a normálne priestorové učenie v Morrisovom vodnom bludisku (28). Tieto údaje naznačujú, že ΔFosB zvyšuje citlivosť zvieraťa na kokaín a možno aj na iné drogy a môže predstavovať mechanizmus pre relatívne dlhodobú senzibilizáciu na tieto drogy.
 striatum
| Zvýšená lokomotorická aktivácia v reakcii na akútne a opakované podávanie kokaínu. |
| Zvýšené odmeňovacie odozvy na kokaín a morfín v testoch kondicionovania na mieste. |
| Zvýšené samodávkovanie nízkych dávok kokaínu. |
| Zvýšená motivácia pre kokaín v skúškach progresívneho pomeru. |
| Zvýšené anxiolytické reakcie na alkohol. |
| Zvýšené nutkavé správanie pri chode. |
Na základe údajov v odkazoch 28 a 29. †‡ §¶
Behaviorálna plasticita sprostredkovaná AFosB v nucleus accumbens-dorzálnom striate
Okrem toho existujú predbežné dôkazy o tom, že účinky ΔFosB môžu siahať ďaleko za rámec regulácie citlivosti na drogy ako takej a môžu zahŕňať zložitejšie správanie súvisiace s procesom závislosti. Myši exprimujúce ΔFosB sa v testoch s progresívnym pomerom samopodávania kokaínu usilovnejšie snažia samy si ho podávať, čo naznačuje, že ΔFosB môže senzibilizovať zvieratá na motivačné vlastnosti kokaínu, a tým viesť k sklonu k relapsu po vysadení drogy .‡ Myši exprimujúce ΔFosB tiež vykazujú zvýšené anxiolytické účinky alkoholu,§ čo je fenotyp, ktorý sa spája so zvýšeným príjmom alkoholu u ľudí. Tieto skoré zistenia spoločne naznačujú, že ΔFosB okrem zvýšenej citlivosti na drogy spôsobuje kvalitatívne zmeny v správaní, ktoré podporujú vyhľadávanie drog. ΔFosB teda môže fungovať ako trvalý „molekulárny prepínač“, ktorý pomáha iniciovať a potom udržiavať kľúčové aspekty závislého stavu. Dôležitou otázkou v rámci súčasného výskumu je, či akumulácia ΔFosB počas expozície droge podporuje vyhľadávanie drog po dlhších abstinenčných obdobiach, a to aj po normalizácii hladín ΔFosB (pozri nižšie).
Dospelé myši, ktoré selektívne nadmerne exprimujú ΔFosB v nucleus accumbens a dorzálnom striate, tiež vykazujú väčší kompulzívny beh v porovnaní s kontrolnými súrodencami.† Tieto pozorovania naznačujú zaujímavú možnosť, že akumulácia ΔFosB v týchto neurónoch zohráva všeobecnejšiu úlohu pri tvorbe a udržiavaní zvykových spomienok a kompulzívneho správania, možno posilnením účinnosti neurónových obvodov, v ktorých tieto neuróny fungujú.
ΔFosB sa po chronickej expozícii kokaínu hromadí v určitých oblastiach mozgu mimo nucleus accumbens a dorzálneho striata. Medzi týmito oblasťami sú najvýznamnejšie amygdala a mediálny prefrontálny kortex (15). Hlavným cieľom súčasného výskumu je pochopiť príspevok indukcie ΔFosB v týchto oblastiach k fenotypu závislosti.
Skoršie práce na myšiach s knockoutom fosB odhalili, že u týchto zvierat sa nepodarilo vyvinúť senzibilizáciu na lokomočné účinky kokaínu, čo je v súlade so zisteniami myší s nadmernou expresiou AFosB uvedených vyššie (22). FosB mutanty však vykazovali zvýšenú citlivosť na akútne účinky kokaínu, čo je v rozpore s týmito ďalšími nálezmi. Interpretácia nálezov s fosB mutantmi je však komplikovaná skutočnosťou, že týmto zvieratám chýba nielen ΔFosB, ale aj FosB v plnej dĺžke. Mutantom navyše chýbajú obidva proteíny v mozgu a od najskorších štádií vývoja. Novšia práca skutočne podporuje závery myší s nadmernou expresiou ΔFosB: indukovateľná nadmerná expresia skráteného mutanta c-Jun, ktorý pôsobí ako dominantný negatívny antagonista ΔFosB, selektívne v nucleus accumbens a dorzálnom striate vykazuje zníženú citlivosť na uspokojivé účinky kokaínu .¶ Tieto objavy zdôrazňujú opatrnosť, ktorá sa musí používať pri interpretácii výsledkov myší s konštitutívnymi mutáciami, a ilustrujú význam myší s indukovateľnými a pre daný typ buniek špecifickými mutáciami v štúdiách plasticity v mozgu dospelých.
Cieľové gény pre AFosB
Keďže ΔFosB je transkripčný faktor, pravdepodobne tento proteín spôsobuje behaviorálnu plasticitu prostredníctvom zmien v expresii iných génov. ΔFosB vzniká alternatívnym zostrihom génu fosB a chýba mu časť C-terminálnej transaktivačnej domény, ktorá je prítomná v FosB plnej dĺžky. V dôsledku toho sa pôvodne predpokladalo, že ΔFosB funguje ako transkripčný represor (29). Práca v bunkových kultúrach však jasne preukázala, že ΔFosB môže buď indukovať, alebo potláčať transkripciu sprostredkovanú AP-1 v závislosti od konkrétneho použitého miesta AP-1 (21, 29–31). FosB plnej dĺžky má rovnaké účinky ako ΔFosB na určité promótorové fragmenty, ale odlišné účinky na iné. Na pochopenie mechanizmov, ktoré sú základom týchto rôznych účinkov ΔFosB a FosB, je potrebný ďalší výskum.
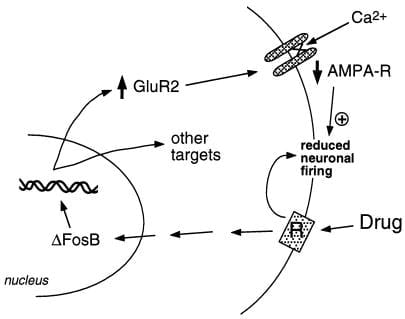
Naša skupina použila dva prístupy na identifikáciu cieľových génov pre ΔFosB. Jedným z nich je prístup kandidátskych génov. Spočiatku sme považovali glutamátové receptory kyseliny a-amino-3-hydroxy-5-metyl-4-izoxazolpropiónovej (AMPA) za predpokladané ciele, vzhľadom na dôležitú úlohu glutamátergického prenosu v nucleus accumbens. Doterajšia práca naznačila, že jedna konkrétna podjednotka receptora glutamátu AMPA, GluR2, môže byť dobrým cieľom pre AFOSB (obr. 2). Expresia GluR2, ale nie expresia iných podjednotiek AMPA receptora, sa zvyšuje v nucleus accumbens (ale nie v dorzálnom striate) po nadmernej expresii ΔFosB (28) a expresia dominantného negatívneho mutanta zoslabuje schopnosť kokaínu indukovať proteín. Okrem toho promótor génu GluR2 obsahuje konsenzuálne miesto AP-1, ktoré sa viaže na AFosB (28). Nadexpresia GluR2 v nucleus accumbens použitím vírusom sprostredkovaného génového prenosu zvyšuje citlivosť zvieraťa na uspokojivé účinky kokaínu, čím napodobňuje časť fenotypu pozorovaného u myší exprimujúcich ΔFosB (28). Indukcia GluR2 by mohla zodpovedať za zníženú elektrofyziologickú citlivosť neurónov nucleus accumbens na agonisty receptora AMPA po chronickom podaní kokaínu (32), pretože receptory AMPA obsahujúce GluR2 vykazujú zníženú celkovú vodivosť a zníženú priepustnosť Ca2 +. Znížená odozva týchto neurónov na excitačné vstupy môže potom zosilniť odozvu na zneužívanú drogu. Avšak spôsoby, ako dopaminergné a glutamatergické signály v nucleus accumbens regulujú návykové správanie, zostávajú neznáme; bude to vyžadovať úroveň porozumenia nervového obvodu, ktorá ešte nie je k dispozícii.
Obrázok 2
Podjednotka AMPA glutamátového receptora, GluR2, je predpokladaným cieľom pre ΔFosB. Je znázornené, ako môže indukcia GluR2 sprostredkovaná ΔFosB zmeniť fyziologickú citlivosť neurónov nucleus accumbens a viesť k senzibilizovaným reakciám na drogy. Podľa tejto schémy drogy produkujú svoje akútne posilňujúce účinky prostredníctvom inhibície neurónov nucleus accumbens. Pri opakovanej expozícii drogy indukujú ΔFosB, ktorý reguluje početné cieľové gény vrátane GluR2. To zvyšuje podiel AMPA receptorov (AMPA-R) na neurónoch nucleus accumbens, ktoré obsahujú podjednotku GluR2, čo spôsobuje zníženie celkového prúdu AMPA a zníženie prúdu Ca2+. Táto znížená excitabilita by mohla spôsobiť, že neuróny budú citlivejšie na akútne inhibičné účinky liekov, a tým aj na posilňujúce účinky liekov.
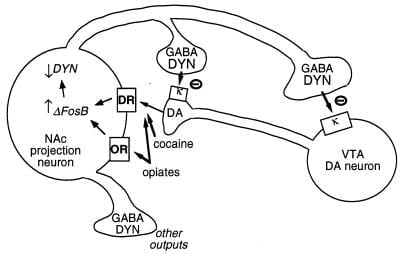
Ďalším predpokladaným cieľom pre ΔFosB je gén kódujúci dynorfín . Ako už bolo uvedené, dynorfín je exprimovaný v podskupine neurónov strednej ostnatej oblasti nucleus accumbens, ktoré vykazujú indukciu ΔFosB . Zdá sa, že dynorfín funguje v medzibunkovej spätnej väzbe: jeho uvoľňovanie inhibuje dopaminergné neuróny, ktoré inervujú neuróny strednej ostnatej oblasti, prostredníctvom κ opioidných receptorov prítomných na dopaminergných nervových zakončeniach v nucleus accumbens a tiež na bunkových telách a dendritoch vo ventrálnej tegmentálnej oblasti (obr. 3) (33–35). Táto myšlienka je v súlade so schopnosťou agonistu κ receptora po podaní do ktorejkoľvek z týchto dvoch oblastí mozgu znižovať odmenu za liek (35).
Nedávna práca naznačila, že ΔFosB znižuje expresiu dynorfínu,† čo by mohlo prispieť k zosilneniu mechanizmov odmeňovania pozorovaných pri indukcii ΔFosB. Je zaujímavé, že iný transkripčný faktor regulovaný liekmi, CREB (proteín viažuci cAMP response element) (2, 3), vykazuje opačný účinok: indukuje expresiu dynorfínu v nucleus accumbens a znižuje odmeňujúce vlastnosti kokaínu a morfínu (4).**
Keďže aktivácia CREB vyvolaná liekom sa po podaní lieku rýchlo rozptýli, takáto recipročná regulácia dynorfínu pomocou CREB a ΔFosB by mohla vysvetliť recipročné zmeny správania, ku ktorým dochádza počas skorých a neskorých fáz abstinenčných príznakov, pričom v skorých fázach abstinenčných príznakov prevládajú negatívne emocionálne symptómy a znížená citlivosť na liek a v neskorších časových bodoch prevláda senzibilizácia na odmeňujúce a stimulujúce motivačné účinky liekov.
Obrázok 3
Dynorfín je predpokladaným cieľom pre ΔFosB. Zobrazený je dopamínový (DA) neurón ventrálnej tegmentálnej oblasti (VTA) inervujúci triedu GABAergných projekčných neurónov nucleus accumbens (NAc), ktorý exprimuje dynorfín (DYN). Dynorfín slúži ako mechanizmus spätnej väzby v tomto okruhu: dynorfín, uvoľňovaný z terminálov neurónov NAc, pôsobí na κ opioidné receptory nachádzajúce sa na nervových termináloch a bunkových telách neurónov DA, aby inhiboval ich fungovanie. ΔFosB môže inhibíciou expresie dynorfínu znížiť túto spätnú väzbu a zvýšiť odmeňujúce vlastnosti drog zneužívaných. Recipročný účinok CREB na tento systém nie je znázornený: CREB zvyšuje expresiu dynorfínu , a tým znižuje odmeňujúce vlastnosti drog zneužívaných (4). GABA, kyselina γ-aminomaslová; DR, dopamínový receptor; OR, opioidný receptor.
Druhý prístup použitý na identifikáciu cieľových génov pre ΔFosB zahŕňa analýzu DNA microarray. Indukovateľná nadmerná expresia ΔFosB zvyšuje alebo znižuje expresiu mnohých génov v nucleus accumbens (36). Aj keď je v súčasnosti potrebných veľa práce na validáciu každého z týchto génov ako fyziologických cieľov ΔFosB a na pochopenie ich príspevku k fenotypu závislosti, zdá sa, že jedným dôležitým cieľom je Cdk5 (cyklín-dependentná kináza-5). Cdk5 bol teda pôvodne identifikovaný ako ΔFosB-regulovaný použitím mikročipov a neskôr sa ukázalo, že je indukovaný v nucleus accumbens a dorzálnom striate po chronickom podaní kokaínu (37). AFosB aktivuje gén cdk5 prostredníctvom miesta AP-1 prítomného v promótore génu (36). Tieto dáta spoločne podporujú schému, pri ktorej kokaín indukuje expresiu Cdk5 v týchto mozgových oblastiach prostredníctvom ΔFosB. Zdá sa, že indukcia Cdk5 mení dopaminergnú signalizáciu aspoň čiastočne zvýšenou fosforyláciou DARPP-32 (37), ktorý sa po fosforylácii Cdk1 (5) prevedie z inhibítora proteínovej fosfatázy-26 na inhibítor proteínkinázy A.
Úloha AFosB v mediácii „Trvalá“ plasticita voči drogám zneužívania
Hoci signál ΔFosB má relatívne dlhú životnosť, nie je trvalý. ΔFosB sa postupne degraduje a po 1 – 2 mesiacoch od vysadenia drogy ho už nemožno detegovať v mozgu, aj keď určité abnormality správania pretrvávajú oveľa dlhšie. Preto sa zdá, že ΔFosB sám o sebe nie je schopný sprostredkovať tieto semipermanentné abnormality správania. Ťažkosti s nájdením molekulárnych adaptácií, ktoré sú základom extrémne stabilných zmien správania spojených so závislosťou, sú analogické s výzvami, ktorým čelia v oblasti učenia a pamäte. Hoci existujú elegantné bunkové a molekulárne modely učenia a pamäte, doteraz nebolo možné identifikovať molekulárne a bunkové adaptácie, ktoré by boli dostatočne dlhotrvajúce na to, aby vysvetlili vysoko stabilné behaviorálne spomienky. ΔFosB je v skutočnosti najdlhšie trvajúca adaptácia, aká sa vyskytuje v dospelom mozgu, nielen v reakcii na drogy, ale aj na akúkoľvek inú poruchu (ktorá nezahŕňa lézie). Na vysvetlenie tohto rozporu sa vyvinuli dva návrhy, a to v oblasti závislosti aj učenia a pamäte.
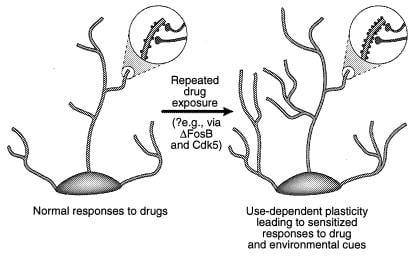
Jednou z možností je, že prechodnejšie zmeny v génovej expresii, ako sú tie sprostredkované prostredníctvom ΔFosB alebo iných transkripčných faktorov (napr. CREB), môžu sprostredkovať dlhodobejšie zmeny v neuronálnej morfológii a synaptickej štruktúre. Napríklad zvýšenie hustoty dendritických ostňov (najmä zvýšenie počtu dvojhlavých ostňov) sprevádza zvýšenú účinnosť glutamatergických synapsií na pyramídových neurónoch hipokampu počas dlhodobej potenciácie (38–40) a je paralelné so zvýšenou behaviorálnou citlivosťou na kokaín sprostredkovanou na úrovni stredne ostnatých neurónov nucleus accumbens (41). Nie je známe, či sú takéto štrukturálne zmeny dostatočne dlhodobé na to, aby vysvetlili vysoko stabilné zmeny v správaní, hoci tieto pretrvávajú najmenej 1 mesiac po vysadení drogy. Nedávne dôkazy naznačujú možnosť, že ΔFosB a jeho indukcia Cdk5 je jedným z mediátorov zmien synaptickej štruktúry v nucleus accumbens vyvolaných liekmi (obr. 4).‡‡ Infúzia inhibítora Cdk5 do nucleus accumbens teda zabraňuje schopnosti opakovanej expozície kokaínu zvýšiť hustotu dendritických chrbtíc v tejto oblasti. To je v súlade s názorom, že Cdk5, ktorý je obohatený v mozgu, reguluje nervovú štruktúru a rast (pozri odkazy 36 a 37). Je možné, hoci to v žiadnom prípade nie je dokázané, že takéto zmeny v neuronálnej morfológii môžu pretrvávať aj po samotnom signále ΔFosB.
Obrázok 4
Regulácia dendritickej štruktúry zneužívanými drogami. Je znázornená expanzia dendritického stromu neurónu po chronickom vystavení sa návykovým látkam, ako to bolo pozorované pri kokaíne v nucleus accumbens a prefrontálnej kôre (41). Oblasti zväčšenia ukazujú nárast dendritických tŕňov, ktoré sa predpokladajú v spojení s aktivovanými nervovými zakončeniami. Toto zvýšenie hustoty dendritickej chrbtice môže byť sprostredkované prostredníctvom ΔFosB a následnou indukciou Cdk5 (pozri text). Takéto zmeny v dendritickej štruktúre, ktoré sú podobné zmenám pozorovaným v niektorých modeloch učenia (napr. Dlhodobá potenciacia), by mohli sprostredkovať senzibilizované reakcie s dlhou životnosťou na návykové látky alebo podnety na životné prostredie. [Reprodukované so súhlasom ref. 3 (Autorské práva 2001, Macmillian Magazines Ltd.)].
Ďalšou možnosťou je, že prechodná indukcia transkripčného faktora (napr. ΔFosB, CREB) vedie k trvalejším zmenám v génovej expresii prostredníctvom modifikácie chromatínu . Predpokladá sa, že tieto a mnohé ďalšie transkripčné faktory aktivujú alebo potláčajú transkripciu cieľového génu podporovaním acetylácie, respektíve deacetylácie histónov v blízkosti génu (42). Hoci takáto acetylácia a deacetylácia histónov môže zjavne prebiehať veľmi rýchlo, je možné, že ΔFosB alebo CREB môžu viesť k dlhšie trvajúcim adaptáciám v enzymatickom mechanizme, ktorý riadi acetyláciu histónov. ΔFosB alebo CREB môžu tiež podporovať dlhšie trvajúce zmeny v génovej expresii reguláciou iných modifikácií chromatínu (napr. metylácia DNA alebo histónov), ktoré sa podieľajú na trvalých zmenách v génovej transkripcii, ku ktorým dochádza počas vývoja (pozri odkazy 42 a 43). Hoci tieto možnosti zostávajú špekulatívne, mohli by poskytnúť mechanizmus, ktorým prechodné adaptácie na drogu zneužívanú látkou (alebo inú poruchu) vedú v podstate k celoživotným behaviorálnym následkom.
Referencie
- ↵
- Nestler EJ,
- Hope BT,
- Widnell KL
(1993) Neuron 11: 995 – 1006.
CrossRef Medline Web of Science
- ↵
- Berke JD,
- Hyman SE
(2000) Neuron 25: 515 – 532.
CrossRef Medline Web of Science
- ↵
- Nestler EJ
(2001) Nat Rev Neurosci 2: 119 – 128.
CrossRef Medline Web of Science
- ↵
- Carlezon WA Jr,
- Thome J,
- Olson VG,
- Lane-Ladd SB,
- Brodkin ES,
- Hiroi N,
- Duman RS,
- Neve RL,
- Nestler EJ
(1998) Veda 282: 2272 – 2275.
-
- O'Donovan KJ,
- Tourtellotte WG,
- Millbrandt J,
- Baraban JM
(1999) Trendy Neurosci 22: 167 – 173.
CrossRef Medline Web of Science
- ↵
- Mackler SA,
- Korutla L,
- Cha XY,
- Koebbe MJ,
- Fournier KM,
- Bowers MS,
- Kalivas PW
(2000) J Neurosci 20: 6210 – 6217.
- ↵
- Morgan JI,
- Curran T
(1995) Trendy Neurosci 18: 66 – 67.
CrossRef Medline Web of Science
- ↵
- Young ST,
- Porrino LJ,
- Iadarola MJ
(1991) Proc Natl Acad Sci USA 88: 1291 – 1295.
-
- Graybiel AM,
- Moratalla R,
- Robertson HA
(1990) Proc Natl Acad Sci USA 87: 6912 – 6916.
-
- Nádej B,
- Kosofsky B,
- Hyman SE,
- Nestler EJ
(1992) Proc Natl Acad Sci USA 89: 5764 – 5768.
- ↵
- Kelz MB,
- Nestler EJ
(2000) Curr Opin Neurol 13: 715 – 720.
CrossRef Medline Web of Science
- ↵
- Koob GF,
- Sanna PP,
- Bloom FE
(1998) Neuron 21: 467 – 476.
CrossRef Medline Web of Science
- ↵
- Wise RA
(1998) Závislosť od alkoholu v liekoch 51: 13 – 22.
CrossRef Medline Web of Science
- ↵
- Hope BT,
- No HE,
- Kelz MB,
- Vlastné DW,
- Iadarola MJ,
- Nakabeppu Y,
- Duman RS,
- Nestler EJ
(1994) Neuron 13: 1235 – 1244.
CrossRef Medline Web of Science
- ↵
- Nye H,
- Hope BT,
- Kelz M,
- Iadarola M,
- Nestler EJ
(1995) J Pharmacol Exp Ther 275: 1671 – 1680.
-
- No HE,
- Nestler EJ
(1996) Mol Pharmacol 49: 636 – 645.
- ↵
- Moratalla R,
- Elibol B,
- Vallejo M,
- Graybiel AM
(1996) Neuron 17: 147 – 156.
CrossRef Medline Web of Science
- ↵
- Pich EM,
- Pagliusi SR,
- Tessari M,
- Talabot-Ayer D,
- Hooft van Huijsduijnen R,
- Chiamulera C
(1997) Veda 275: 83 – 86.
- ↵
- Chen JS,
- No HE,
- Kelz MB,
- Hiroi N,
- Nakabeppu Y,
- Hope BT,
- Nestler EJ
(1995) Mol Pharmacol 48: 880 – 889.
- ↵
- Hiroi N,
- Brown J,
- Ye H,
- Saudou F,
- Vaidya VA,
- Duman RS,
- Greenberg ME,
- Nestler EJ
(1998) J Neurosci 18: 6952 – 6962.
- ↵
- Chen J,
- Kelz MB,
- Hope BT,
- Nakabeppu Y,
- Nestler EJ
(1997) J Neurosci 17: 4933 – 4941.
- ↵
- Hiroi N,
- Brown J,
- Haile C,
- Ye H,
- Greenberg ME,
- Nestler EJ
(1997) Proc Natl Acad Sci USA 94: 10397 – 10402.
- ↵
- Fienberg AA,
- Hiroi N,
- Mermelstein P,
- Song WJ,
- Snyder GL,
- Nishi A,
- Cheramy A,
- O'Callaghan JP,
- Miller D,
- Cole DG,
- et al.
(1998) Veda 281: 838 – 842.
- ↵
- Hiroi N,
- Feinberg A,
- Haile C,
- Greengard P,
- Nestler EJ
(1999) Eur J Neurosci 11: 1114 – 1118.
CrossRef Medline Web of Science
- ↵
- Greengard P,
- Allen PB,
- Nairn AC
(1999) Neuron 23: 435 – 447.
CrossRef Medline Web of Science
- ↵
- Bibb JA,
- Snyder GL,
- Nishi A,
- Yan Z,
- Meijer L,
- Fienberg AA,
- Tsai LH,
- Kwon YT,
- Girault JA,
- Czernik AJ,
- et al.
(1999) Príroda (Londýn) 402: 669 – 671.
- ↵
- Chen JS,
- Kelz MB,
- Zeng GQ,
- Sakai N,
- Steffen C,
- Shockett PE,
- Picciotto M,
- Duman RS,
- Nestler EJ
(1998) Mol Pharmacol 54: 495 – 503.
- ↵
- Kelz MB,
- Chen JS,
- Carlezon WA,
- Whisler K,
- Gilden L,
- Beckmann AM,
- Steffen C,
- Zhang YJ,
- Marotti L,
- Vlastný softvér,
- et al.
(1999) Príroda (Londýn) 401: 272 – 276.
- ↵
- Dobrazanski P,
- Noguchi T,
- Kovary K,
- Rizzo CA,
- Lazo PS,
- Bravo R
(1991) Mol Cell Biol 11: 5470 – 5478.
-
- Nakabeppu Y,
- Nathans D
(1991) Bunka 64: 751 – 759.
CrossRef Medline Web of Science
- ↵
- Yen J,
- Wisdom RM,
- Tratner I,
- Verma IM
(1991) Proc Natl Acad Sci USA 88: 5077 – 5081.
- ↵
- Biela FJ,
- Hu XT,
- Zhang XF,
- Wolf ME
(1995) J Pharmacol Exp Ther 273: 445 – 454.
- ↵
- Hyman SE
(1996) Neuron 16: 901 – 904.
CrossRef Medline Web of Science
-
- Kreek MJ
(1997) Pharmacol Biochem Behav 57: 551 – 569.
CrossRef Medline Web of Science
- ↵
- Shippenberg TS,
- Rea W
(1997) Pharmacol Biochem Behav 57: 449 – 455.
CrossRef Medline Web of Science
- ↵
- Chen JS,
- Zhang YJ,
- Kelz MB,
- Steffen C,
- Ang ES,
- Zeng L,
- Nestler EJ
(2000) J Neurosci 20: 8965 – 8971.
- ↵
- Bibb JA,
- Chen JS,
- Taylor JR,
- Svenningsson P,
- Nishi A,
- Snyder GL,
- Yan Z,
- Sagawa ZK,
- Nairn AC,
- Nestler EJ,
- et al.
(2001) Príroda (Londýn) 410: 376 – 380.
- ↵
- Luscher C,
- Nicoll RA,
- Malenka RC,
- Muller D
(2000) Nat Neurosci 3: 545 – 550.
CrossRef Medline Web of Science
-
- Malinow R,
- Mainen ZF,
- Hayashi Y
(2000) Curr Opin Neurobiol 10: 352 – 357.
CrossRef Medline Web of Science
- ↵
- Scannevin RH,
- Huganir RL
(2000) Nat Rev Neurosci 1: 133 – 141.
CrossRef Medline Web of Science
Robinson, TE & Kolb, B. (1999) (1997) Eur. J. Neurosci. 11, 1598–1604.
- ↵
- Carey M,
- Smale ST
(2000) Transkripčná regulácia v eukaryotoch (Cold Spring Harbor Lab. Press, Plainview, NY).
- ↵
- Spencer VA,
- Davie JR
(1999) Gene 240: 1 – 12.
CrossRef Medline Web of Science
 Facebook
 Twitter
- Google+
 CiteULike
 lahodný
 Digg
 Mendeley
HighWire Tlač-hostil články citovať tento článok
- Prírodný a drogový odmenový zákon o mechanizmoch spoločnej neurálnej plasticity s {Delta} FosB ako kľúčovým mediátorom J. Neurosci. 2013 33 (8) 3434-3442
- Drogy, zločin a epigenetika hedonickej allostázy Časopis o súčasnom trestnom súdnictve 2012 28 (3) 314-328
- abstraktné
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- abstraktné
- Celý text (HTML)
- Plný text (PDF)
- Morfín aktivuje E dvadsať šesť podobných transkripčných faktorov-1 / dráha faktora odozvy na sérum cez extracelulárne signálne-riadené kinázy 1 / 2 v bunkách F11 odvodených z neurónov neurónov dorzálneho koreňa J. Pharmacol. Exp. Ther. 2012 342 (1) 41-52
- Molekulárny mechanizmus pre Gateway liek: Epigenetické zmeny iniciované expresiou genómu nikotínu v kokaíne Sci Transl Med 2011 3 (107) 107ra109
- Zvýšená sebestačnosť sacharózy a kokaínu a vyhľadávanie liekov vyvolaných cue po strate VGLUT2 v neurónoch dopamínu stredného mozgu v myšiach J. Neurosci. 2011 31 (35) 12593-12603
- Chronická intermitentná hypoxia zvyšuje krvný tlak a expresiu FosB / {Delta} FosB v centrálnych autonómnych oblastiach Am. J. Physiol. Regul. Integr. Comp. Physiol. 2011 301 (1) R131-R139
- Absencia receptora GPR37 / PAEL zhoršuje fosforyláciu striatálneho Akt a ERK2, expresiu {Delta} FosB a preferenciu podmieneného miesta pre amfetamín a kokaín FASEB J. 2011 25 (6) 2071-2081
- Vzťah medzi trvaním počiatočnej expozície alkoholu a pretrvávaním molekulárnej tolerancie je značne nelineárny J. Neurosci. 2011 31 (7) 2436-2446
- In vivo bioluminiscenčné zobrazovanie odhalilo aktiváciu aktivátora aktivátora Redox-Regulovaný proteín-1 v paraventrikulárnom jadre myší s renovaskulárnou hypertenziou Hypertenzia 2011 57 (2) 289-297
- Striatálna nadmerná expresia {Delta} FosB reprodukuje chronické nedobrovoľné pohyby vyvolané levodopou J. Neurosci. 2010 30 (21) 7335-7343
- Epigenetické sprostredkovanie environmentálnych vplyvov pri závažných psychotických poruchách Schizophr Bull 2009 35 (6) 1045-1056
- DNA-založené MRI sondy pre špecifickú detekciu chronickej expozície amfetamínu v živých mozgoch J. Neurosci. 2009 29 (34) 10663-10670
- Zmenená plasticita dendritickej chrbtice u potkanov potiahnutých kokaínom J. Neurosci. 2009 29 (9) 2876-2884
- Overexpresná obrazovka u Drosophila Identifikuje neuronálne role GSK-3 {beta} / shaggy ako regulátor AP-1-Dependent Developmental Plasticity Genetika 2008 180 (4) 2057-2071
- Prepis MRI: Nový pohľad na živý mozog Neurológ 2008 14 (5) 503-520
- Indukcia {Delta} FosB v orbitofrontálnom kortexe sprostredkováva toleranciu kognitívnej dysfunkcii vyvolanej kokaínom J. Neurosci. 2007 27 (39) 10497-10507
- Trvalá zraniteľnosť voči opätovnému výskytu metamfetamínového správania u myší s mutantnými neurotrofickými faktormi odvodenými z gliálnej bunkovej línie FASEB J. 2007 21 (9) 1994-2004
- {Delta} FosB v Nucleus Accumbens reguluje prístrojové správanie a motiváciu posilňovanú potravinami J. Neurosci. 2006 26 (36) 9196-9204
- Regulácia {Delta} FosB stability fosforyláciou. J. Neurosci. 2006 26 (19) 5131-5142
- Expresia mutantných receptorov NMDA v bunkách obsahujúcich dopamínový receptor D1 zabraňuje senzibilizácii kokaínu a znižuje preferenciu kokaínu J. Neurosci. 2005 25 (28) 6651-6657
- D1 receptory dopamínu modulujú indukciu delta FosB u striatum u potkanov po prerušovanom podávaní morfínu J. Pharmacol. Exp. Ther. 2005 314 (1) 148-154
- Neurobiológia myší vybraných pre aktivitu s vysokou dobrovoľníckou aktivitou Integr. Comp. Biol. 2005 45 (3) 438-455
- Účinky deprivácie a rehydratácie vody na farbenie c-Fos a FosB v supraoptickom jadre potkana a oblasti lamina terminalis \ t Am. J. Physiol. Regul. Integr. Comp. Physiol. 2005 288 (1) R311-R321
- Transkripčná indukcia FosB / {Delta} FosB génu mechanickým stresom v osteoblastoch J Biol Chem 2004 279 (48) 49795-49803
- Indukcia {Delta} FosB v štruktúrach mozgu súvisiacich s odmenou po chronickom strese J. Neurosci. 2004 24 (47) 10594-10602
- Dávkovanie génu Sim1 moduluje odpoveď na homeostatickú výživu na zvýšený tuk v strave u myší Am. J. Physiol. Endocrinol. METABO. 2004 287 (1) E105-E113
- DNA microarray analýza génovej expresie v astrocytoch hlavy optického nervu v reakcii na hydrostatický tlak Physiol. Genomika 2004 17 (2) 157-169
- Superoxid sa podieľa na aktivácii centrálneho nervového systému a sympatoexcitácii srdcového zlyhania vyvolaného infarktom myokardu Circ. Res. 2004 94 (3) 402-409
- Receptory adenozínu A2A v neuroadaptácii na opakovanú dopaminergnú stimuláciu: Dôsledky liečby dyskinézy pri Parkinsonovej chorobe. Neurológia 2003 61 (90116) S74-81
- Cytoplazmatická versus nukleárna lokalizácia proteínov príbuzných s Fos v žabách, Rana esculenta, Testis: In vivo a priamy účinok in vitro na hormón uvoľňujúci hormón uvoľňujúci gonadotropín Biol. Reprod. 2003 68 (3) 954-960
- Periadolescentné myši ukazujú zvýšenú reguláciu delta FosB v reakcii na kokaín a amfetamín J. Neurosci. 2002 22 (21) 9155-9159
- Delta FosB reguluje chod kolesa J. Neurosci. 2002 22 (18) 8133-8138
- Aktivita CREB v shellu nucleus accumbens kontroluje reakcie správania na emocionálne podnety Proc. Natl. Acad. Sci. USA 2002 99 (17) 11435-11440
- Psychogenomika: príležitosti pre pochopenie závislosti J. Neurosci. 2001 21 (21) 8324-8327