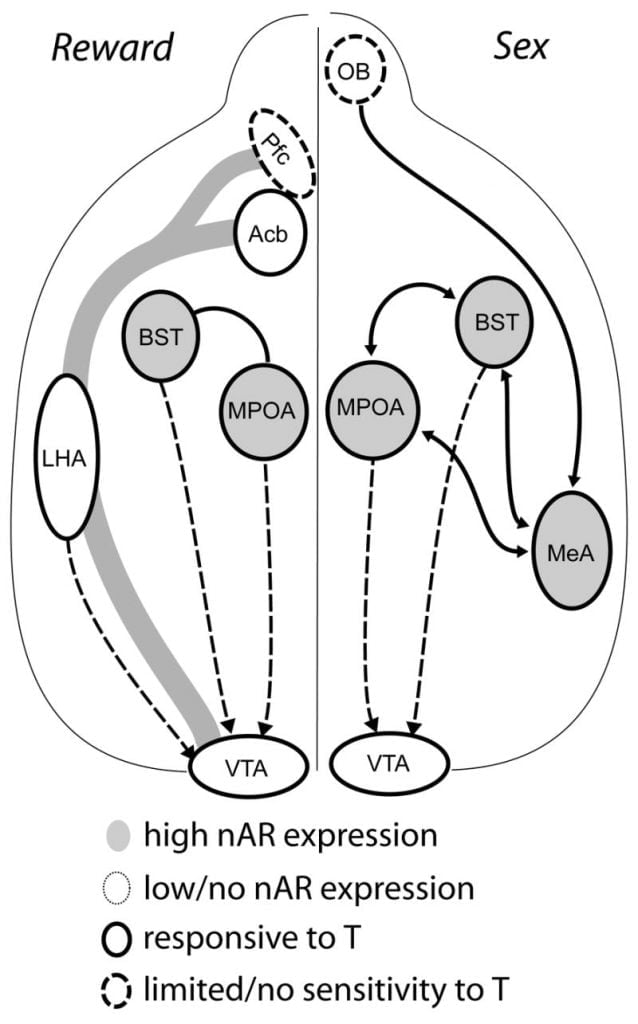
KOMENTÁRE: Vynikajúci prehľad takmer všetkých relevantných výskumov receptorov androgénov, dopamínu a sexuálnych funkcií. Fantastické kreslenie hypotalamus-odmenu obvod vzájomné vzťahy.
Horm Behav. Máj 2008; 53 (5) : 647–658.
Publikované online 13. februára 2008. doi: 10.1016/j.yhbeh.2008.01.010
abstraktné
Dospievanie je spojené so zvýšením správania, ktoré hľadá radosť, ktoré sú zase ovplyvnené pubertálnou aktiváciou hypotalamo-hypofyzárnej-gonádovej osi. Vo zvieracích modeloch prirodzene sa odmeňujúceho správania, ako je pohlavie, testikulárne androgény prispievajú k vývoju a prejavu správania u mužov. Aby sa dosiahlo dozrievanie v správaní, mozog prechádza počas dospievania významnou prestavbou a mnohé zo zmien sú rovnako citlivé na androgény, pravdepodobne pôsobiace prostredníctvom receptorov androgénov (AR). Vzhľadom na citlivú interakciu gonádových hormónov a vývoja mozgu nie je žiadnym prekvapením, že narušenie hladín hormónov počas tohto citlivého obdobia významne mení správanie adolescentov a dospelých. U mužských škrečkov je vystavenie testosterónu počas dospievania potrebné na normálne vyjadrenie sexuálneho správania dospelých. Muži zbavení androgénov počas puberty vykazujú pretrvávajúce deficity v párení. Naopak, androgény samotné nie sú dostatočné na vyvolanie párenia u prepubertálnych samcov, aj keď sú mozgové AR prítomné pred pubertou. Významným záujmom v tomto kontexte je široké použitie anabolických androgénnych steroidov (AAS) počas dospievania. Zneužívanie AAS má potenciál zmeniť časovanie a hladiny androgénov u adolescentných mužov. U škrečkov adolescentná expozícia AAS zvyšuje agresivitu a spôsobuje trvalé zmeny v systémoch neurotransmiterov. Okrem toho, AAS sú samé o sebe posilňujúce, ako je preukázané vlastným podávaním testosterónu a iných AAS. Nedávne dôkazy však naznačujú, že zosilňujúce účinky androgénov nemusia vyžadovať klasickú AR. Na lepšie pochopenie zneužívania AAS je preto potrebné ďalšie skúmanie interakcií medzi androgénmi a odmeňovaním správania v adolescentnom mozgu.
Prehľad
Dospievanie prebúdza mozog pre potešenie aj riziko. U tínedžerov to často nadobúda formu experimentovania s drogami a sexom. V Spojených štátoch je stredný vek prvého pohlavného styku u mužov 16.4 roka a 65 % z nich malo pohlavný styk do 12. ročníka ( Kaiser Family Foundation, 2005 ). Táto populácia má tiež najvyššiu mieru užívania nelegálnych drog v Spojených štátoch. Podľa Národného prieskumu o užívaní drog a zdraví z roku 2004 užilo v uplynulom roku nelegálnu drogu 38 % mužov vo veku 18 – 25 rokov ( SAMHSA/OAS, 2005 ). Okrem toho 31 % dospievajúcich chlapcov užilo drogy alebo alkohol počas svojho posledného sexuálneho styku ( Kaiser Family Foundation, 2005 ). Okrem toho je dospievanie kľúčovým obdobím v etiológii určitých psychopatológií, ako je depresia, úzkosť, poruchy príjmu potravy a poruchy správania. Predpokladáme, že pubertálna sekrécia gonádových hormónov, ich aktivácia steroidných receptorov v mozgu a interakcia medzi hormónmi a skúsenosťami na vývoj mozgu dospievajúcich prispievajú k zmenám správania pozorovaným počas dospievania.
Naším cieľom je preskúmať dôkazy o tom, že gonádové androgény sprostredkovávajú dospievajúce dospievanie a výkonnosť motivovaného správania dospelých, ako aj odmeňujúce vlastnosti tohto správania. Predstavujeme tiež dôkaz, že testosterón sám o sebe je odmeňovaný, čo pravdepodobne prispieva k dozrievajúcim zmenám v motivovanom správaní počas dospievania, keď hladiny testosterónu stúpajú. Táto práca sa zameriava na naše štúdie nervových obvodov, ktoré sú základom mužského sexuálneho správania, najmä v škrečkoch sýrskych, s osobitným dôrazom na interakciu medzi testosterónom a dopamínom (DA). Navrhujeme, aby pubertálne androgény mali prechodné a dlhodobé účinky na okruhy odmeňovania a motivované správanie. Ďalej predpokladáme, že suplementácia exogénnymi androgénmi vo forme anabolicko-androgénnych steroidov (AAS) zvyšuje normálne vplyvy pubertálnych androgénov, čím nepriaznivo ovplyvňuje adolescentný vývoj mozgu a správania.
Dospievanie ako citlivé obdobie pre vývoj mozgu
Nakoniec je mozog spúšťačom aj cieľom pôsobenia androgénov počas dospievania. U mladých chlapcov (<12 rokov) a mladých škrečkov (vo veku <28 dní) sú cirkulujúce androgény a gonadotropíny na bazálnej úrovni. Pretože sekrécia luteinizačného hormónu z prednej hypofýzy stúpa v reakcii na hormón uvoľňujúci hypotalamický gonadotropín, cirkulujúce koncentrácie testosterónu sa významne zvyšujú. K tomu dochádza v Tannerovom štádiu II / III (14 rokov) u chlapcov a do 28 dní veku u škrečkov. V čase, keď chlapci dosiahnu Tannerovu fázu IV / V (približne 16 rokov), alebo keď sú škrečky 50–60 dní, je endogénny testosterón v rozmedzí pre dospelých mužov. Vylučovanie pubertálneho hormónu sa zhoduje s obdobím dospievania, ktoré u ľudí prebieha približne od 12 do 20 rokov. Pubertálne hormóny pôsobia nielen na periférne tkanivá, aby spôsobili výskyt sekundárnych pohlavných znakov, ktoré sú zjavnými znakmi puberty, ale tiež pôsobia centrálne na ovplyvnenie remodelácie mozgu dospievajúcich a dozrievania správania. Ďalej fyziologické a neurologické zmeny, ktoré spôsobujú pubertálne hormóny, vedú k významným zmenám v prežívaní jednotlivca, ktoré môžu sami výrazne zmeniť priebeh vývoja mozgu. Pubertálne zvýšenie pohlavných steroidných hormónov teda riadené vývojovým časovým dozrievaním reprodukčnej neuroendokrinnej osi zase formuje vývoj správania adolescentov prostredníctvom priamych aj nepriamych vplyvov na nervový systém.
Ľudská adolescencia je teraz uznávaná ako hlavné a dynamické obdobie nervového vývoja, počas ktorého sú behaviorálne okruhy remodelované a prepracované. Hoci mozog 5-ročného dieťaťa je už 90% jeho dospelej veľkosti (Dekaban, 1978), značná prestavba je ešte len prísť. Tento koncept bol zapálený výskumom u ľudí aj zvierat, ktoré dokumentujú, že mnohé zo základných vývojových procesov vyskytujúcich sa počas perinatálneho vývoja mozgu sú rekapitulované počas dospievania. Tieto procesy zahŕňajú neurogenézu (Eckenhoff a Rakic, 1988; On a Crews, 2007; Pinos, Collado, Rodriguez-Zafra, Rodriguez, Segovia a Guillamon, 2001; Rankin, Partlow, McCurdy, Giles a Fisher, 2003), programovaná bunková smrť (Nunez, Lauschke a Juraska, 2001; Nunez, Sodhi a Juraska, 2002), vypracovanie a prerezávanie dendritických arborizácií a synapsií (\ tAndersen, Rutstein, Benzo, Hostetter a Teicher, 1997; Huttenlocher a Dabholkar, 1997; Lenroot a Giedd, 2006; Sowell, Thompson, Leonard, Vitajte, Kan a Toga, 2004), myelinizácia (Beneš, korytnačka, Khan a Farol, 1994; Paus, Collins, Evans, Leonard, Pike a Zijdenbos, 2001; Sowell, Thompson, Tessner a Toga, 2001) a sexuálnej diferenciácie (Chung, De Vries a Swaab, 2002; Davis, Shryne a Gorski, 1996; Nunez a kol., 2001). Teda vývojová trajektória postnatálneho mozgu nie je lineárna, ale je skôr charakterizovaná adolescentným rýchlym vývojom a zahŕňa tak progresívne, ako aj regresívne udalosti. Ako každý vývojový biológ vie, obdobia rýchlej zmeny vývoja signalizujú zvýšenú citlivosť a zraniteľnosť voči zmenám závislým na skúsenostiach a na nepriaznivé následky rušenia a urážky, a nie je dôvod si myslieť, že vývoj ľudského adolescentného mozgu je výnimkou (Andersen, 2003; Spear, 2000). Predpokladá sa teda, že poruchy v načasovaní vplyvov pubertálneho hormónu na adolescentný mozog budú mať dlhodobé následky pre správanie dospelých.
Androgény a nervové obvody pre motivované správanie
Pretože adolescencia je prechodná a dynamická fáza vývoja, bolo by ťažké vyhodnotiť adolescentný mozog a správanie v izolácii. Namiesto toho, aby sme ocenili jedinečný charakter dospievania, je užitočné ho kontrastovať s mozgom a správaním dospelých dospelých. Preto, so zameraním tejto práce na mužské sexuálne správanie a odmenu, je dôležité zaviesť neurálne obvody pre kopuláciu a sexuálnu motiváciu u dospelých mužov vrátane úlohy gonádových steroidných hormónov pri behaviorálnej aktivácii a distribúcii receptorov pre androgény (AR) a estrogény (ER).
AR sú prítomné v bunkových skupinách, ktoré tvoria nervové obvody sprostredkujúce odmeňujúce sociálne správanie, ako je sex. Okrem toho sú mozgové AR exprimované pred pubertou u škrečkov a sú upregulované androgénmi u mladých aj dospelých samcov ( Kashon, Hayes, Shek a Sisk, 1995 ; Meek, Romeo, Novak a Sisk, 1997 ). V mozgu hlodavcov existuje podstatné prekrývanie v distribúcii AR a ER ( Wood a Newman, 1995 ) a aromatázy ( Celotti, Negri-Cesi a Poletti, 1997 ), vrátane α aj β foriem estrogénového receptora ( Shughrue, Lane a Merchenthaler, 1997 ). Po naviazaní na ligand fungujú „klasické“ AR a ER ako transkripčné faktory na indukciu transkripcie a syntézy nových proteínov. Nie je prekvapujúce, že tieto účinky sledujú relatívne pomalý časový priebeh s oneskoreným nástupom účinku. Stimulácia sexuálneho správania samcov škrečkov steroidmi ( Noble a Alsum, 1975 ) je v súlade s účinkami prostredníctvom klasických genomických účinkov. Napríklad na obnovenie párenia u dlhodobo kastrovaných je potrebných 2 týždne expozície steroidom. Novšie štúdie na potkanoch tiež preukázali rýchle bunkové účinky androgénov v oblastiach mozgu, ktoré majú málo klasických receptorov ( Mermelstein, Becker a Surmeier, 1996 ). Predpokladá sa, že tieto steroidné účinky sú sprostredkované negenomickými receptormi. Zatiaľ čo distribúcia klasických AR a ER v mozgu škrečka je relatívne obmedzená ( Wood a Swann, 1999 ), potenciálne mozgové ciele pre negenomické androgénne účinky sú oveľa širšie.
Mediálna preoptická oblasť (MPOA) hrá ústrednú úlohu pri kopulácii u samcov, od zlatých rybiek po ľudí (prehľad v Hull, Wood a McKenna, 2006 ). Okrem toho, MPOA škrečka transdukuje gonádové steroidné hormóny prostredníctvom hojného AR a ER a testosterónové implantáty v MPOA sú dostatočné na obnovenie sexuálnej aktivity u dlhodobo kastrovaných jedincov ( Wood a Swann, 1999 ). U samcov potkanov pôsobia gonádové steroidy v MPOA tak, že regulujú bazálne uvoľňovanie DA ( Putnam, Sato a Hull, 2003 ) a stimulujú párenie ( Hull, Du, Lorrain a Matuszewich, 1995 ). Spočiatku dochádza k miernemu zvýšeniu DA, keď je samica umiestnená za zástenu. Počas kopulácie sa DA v MPOA ďalej zvyšuje (+50 % východiskovej hodnoty) a tento účinok vyžaduje androgény ( Hull a kol., 1995 ; Putnam a kol., 2003 ). Nie je prekvapujúce, že u kastrovaných samcov, ktorí sa nepária, sa MPOA DA nezvyšuje ( Hull a kol., 1995 ). Interpretácia tohto výsledku je trochu náročná, pretože nedostatok uvoľňovania DA je skreslený absenciou sexuálnej aktivity. Uvoľňovanie DA pri MPOA však koreluje so stratou párenia u krátkodobo kastrovaných samcov ( Hull a kol., 1995 ) a s testosterónom indukovanou obnovou sexuálnej aktivity u dlhodobo kastrovaných samcov ( Du, Lorrain a Hull, 1998 ; Putnam, Du, Sato a Hull, 2001 ).
V rámci MPOA hlodavcov hrajú androgénne a estrogénne metabolity testosterónu špecifickú úlohu v regulácii párenia ( Putnam a kol., 2003 ; Putnam, Sato, Riolo a Hull, 2005 ). Latencia do začatia kopulácie (mount alebo intromission) je jedným z ukazovateľov sexuálnej motivácie. Latencia do sexuálnej aktivity je citlivá na estrogény prostredníctvom udržiavania syntázy oxidu dusnatého v MPOA, ktorá následne udržiava bazálne hladiny DA. Kastráty liečené estrogénmi vykazujú vysoké bazálne hladiny DA, ktoré silne korelujú so schopnosťou iniciovať kopuláciu. Nevykazujú však zvýšenie uvoľňovania DA vyvolané samicou a kopuláciou, ktoré silne koreluje so sexuálnym výkonom. V dôsledku toho je ich sexuálny výkon pod úrovňou intaktných jedincov. Na druhej strane, kastráty liečené samotnými nearomatizovateľnými androgénmi nevykazujú zvýšené bazálne hladiny DA a nedokážu iniciovať kopuláciu. Pre normálny sexuálny výkon sú preto potrebné estrogény aj androgény. Sexuálny výkon sa zvyčajne vyjadruje ako miera frekvencie mountov, intromisí a ejakulácií. Iba keď sú nahradené estrogény aj androgény, kastrovaní samci vykazujú zvýšené hladiny DA (a kratšie miery latencie) a zvýšenie DA vyvolané samicami a kopuláciou (a zvýšené miery frekvencie). Týmto spôsobom estrogény v MPOA prispievajú k sexuálnej motivácii a estrogény aj androgény k sexuálnemu výkonu.
Hoci je testosterón nevyhnutný na uvoľňovanie DA z MPOA počas kopulačného správania samcov a pre samotné párenie, ani testosterón, ani párenie samotné nemôžu vyvolať DA pri MPOA. Namiesto toho sú na uvoľňovanie DA pri MPOA potrebné aj chemosenzorické signály od samíc rovnakého druhu. U hlodavcov sú chemosenzorické stimuly primárnou senzorickou modalitou na iniciovanie sexuálneho správania samcov ( obr. 1 ). Chemosenzorické signály sa prenášajú z čuchových cibuliek do MPOA cez mediálne amygdaloidné jadro a jadro lôžka stria terminalis, štruktúry s bohatým AR a ER ( Wood a Swann, 1999 ). Aby sme určili úlohu chemosenzorických signálov pri DA vyvolanej párením, merali sme DA z MPOA počas párenia u samcov škrečkov s intaktnými gonádami s unilaterálnou čuchovou bulbektómiou (UBx, Triemstra, Nagatani a Wood, 2005 ). Hoci bilaterálne odstránenie čuchových cibuliek eliminuje sexuálnu aktivitu a uvoľňovanie DA z MPOA, unilaterálna bulbektómia neinterferuje s párením. V tejto štúdii kopulácia indukovala uvoľňovanie MPOA DA pri meraní kontralaterálne k poškodenému čuchovému bulbu, ale nie v ipsilaterálnej hemisfére ( obr. 2 ). Podobné výsledky boli pozorované u samcov potkanov s léziami mediálnej amygdaly ( Dominguez, Riolo, Xu a Hull, 2001 ). V súvisiacej štúdii chemická stimulácia mediálnej amygdaly u potkanov indukovala uvoľňovanie MPOA DA ekvivalentné uvoľňovaniu počas kopulácie ( Dominguez a Hull, 2001 ). Tieto údaje spolu naznačujú, že testosterón vytvára permisívne prostredie, ktoré umožňuje vonkajším senzorickým podnetom dosiahnuť MPOA a indukovať uvoľňovanie DA počas kopulácie.

Obr. 2
Sexuálne správanie a iné prirodzené odmeny v konečnom dôsledku aktivujú nervové dráhy odmeny. Mezokortikolimbický okruh DA pozostáva z ventrálnej tegmentálnej oblasti (VTA), nucleus accumbens (Acb) a prefrontálneho kortexu (Pfc). Telá dopamínových buniek nachádzajúcich sa vo VTA vyčnievajú rostrálne k Acb a Pfc ( Koob a Nestler, 1997 ). U potkanov sa DA uvoľňuje do Acb počas pohlavného styku ( Pfaus, Damsma, Nomikos, Wenkstern, Blaha, Phillips a Fibiger, 1990 ). Mnohé drogy tiež pôsobia v mezolimbickom systéme DA, čím zvyšujú uvoľňovanie DA (amfetamíny) alebo inhibujú spätné vychytávanie DA (kokaín, Di Chiara a Imperato, 1988 ), čím posilňujú ich návykové vlastnosti. Týmto spôsobom má testosterón potenciál ovplyvniť uvoľňovanie DA v Acb, a to ako prostredníctvom zvýšenia sexuálneho správania, tak aj prostredníctvom svojho pôsobenia ako drogy (pozri nižšie).
Súčasné dôkazy naznačujú, že mezokortikolimbický DA systém dozrieva počas dospievania. Hustota DA vlákien Acb sa u pieskomilov počas dospievania dramaticky zvyšuje, čo naznačuje, že počas adolescentného obdobia dochádza k významnému dozrievaniu dopaminergných projekcií VTA do Acb ( Lesting, Neddens a Teuchert-Noodt, 2005 ). Okrem toho je dopaminergný vstup do GABA (kyselina γ-aminomaslová)-ergných buniek v mediálnom prefrontálnom kortexe potkanov obohatený a modulovaný serotonergnými systémami počas pubertálneho vývoja ( Benes, Taylor a Cunningham, 2000 ) a manipulácia s androgénmi u dospelých potkanov vedie k zmenám v hustote dopaminergných axónov v prefrontálnom kortexe ( Kritzer, 2003 ). Pfc, Acb a VTA majú málo AR alebo ER, hoci ERβ je prítomný vo VTA ( Shughrue a kol., 1997 ). Preto sa zdá pravdepodobné, že androgény ovplyvňujú mezokortikolimbický DA systém prostredníctvom androgén-senzitívnych aferentných vlákien alebo prostredníctvom ERβ vo VTA, ako je to v hypotalame (Handa a kol., toto číslo). Naše údaje ukazujú, že androgén-senzitívne bunky u samcov škrečkov sa premietajú do VTA zo štruktúr spojených so správaním citlivým na steroidy. Napríklad MPOA aj bed nucleus stria terminalis (BST) obsahujú veľké množstvo AR-pozitívnych buniek premietnutých do VTA ( Sato a Wood, 2006 ). Ventrálne pallidum, hlavný cieľ eferentu Acb ( Zahm a Heimer, 1990 ), tiež obsahuje mnoho AR-pozitívnych buniek premietnutých do VTA. Tieto projekcie poskytujú androgénom príležitosť modifikovať aktivitu mezokortikolimbického DA systému.
Organizácia správania závislá od steroidov počas dospievania
Tradičný pohľad na pôsobenie hormónov na správanie adolescentov je založený na aktivačných účinkoch steroidných hormónov, ktoré sa vzťahujú na schopnosť steroidov uľahčovať správanie v špecifických sociálnych kontextoch pôsobením v cieľových bunkách v neurálnych obvodoch, ktoré sú základom správania. Aktivačné účinky sú prechodné v tom zmysle, že prichádzajú a odchádzajú s prítomnosťou a neprítomnosťou hormónov a zvyčajne sa spájajú s prejavmi správania dospelých. Naproti tomu organizačné účinky sa vzťahujú na schopnosť steroidov formovať štruktúru nervového systému počas vývoja. Štrukturálna organizácia je trvalá, pretrváva aj po období vystavenia hormónom a určuje neurálne a behaviorálne reakcie na steroidy v dospelosti. Naše chápanie vývojového vzťahu medzi organizačnými a aktivačnými účinkami steroidných hormónov sa vyvíjalo za posledných 50 rokov. Phoenix a kolegovia ako prví navrhli, že behaviorálne (aktivačné) reakcie dospelých na steroidné hormóny sú programované (organizované) steroidnými hormónmi počas maximálne citlivého obdobia perinatálneho vývoja ( Phoenix, Goy, Gerall a Young, 1959 ). Neskôr Scott a kolegovia položili teoretický základ pre existenciu viacerých senzitívnych období pre progresívnu organizáciu nervového systému a poznamenali, že senzitívne obdobia sa s najväčšou pravdepodobnosťou vyskytujú počas období rýchlych vývojových zmien (1974). Následne Arnold a Breedlove poukázali na to, že organizácia mozgu závislá od steroidov sa môže vyskytnúť aj mimo senzitívnych období vývoja ( Arnold a Breedlove, 1985 ). Výskum využívajúci rôzne zvieracie modely a behaviorálne systémy za posledných 15 rokov jasne ukazuje, že mozog dospievajúcich je citlivý na aktivačné aj organizačné účinky gonádových steroidov (prehľad v Sisk a Zehr, 2005 ). A podobne ako iné obdobia rýchlych vývojových zmien, aj adolescencia predstavuje definované okno príležitostí pre remodeláciu mozgu závislú od steroidov.
Naša práca s použitím škrečka ako zvieracieho modelu poskytuje dôkazy o tom, že sociálne správanie samcov je počas dospievania modifikované steroidmi ( Schulz, Menard, Smith, Albers a Sisk, 2006 ; Schulz a Sisk, 2006 ). Pred pubertou nemôže liečba testosterónom aktivovať sexuálne správanie u škrečkov, čo naznačuje, že procesy dozrievania, ktoré by spôsobili, že nervové okruhy sú náchylné na aktiváciu alebo organizáciu steroidnými hormónmi, ešte neprebehli ( Meek a kol., 1997 ; Romeo, Richardson a Sisk, 2002a ). Naopak, zatiaľ čo zjavné prejavy reprodukčného správania samcov v dospelosti si počas dospievania nevyhnutne nevyžadujú prítomnosť gonádových steroidov, maximálne prejavy správania si ich vyžadujú. Pri porovnaní maskulínneho reprodukčného správania u samcov kastrovaných buď prepubertálne (NoT@P), alebo postpubertálne (T@P) a následne liečených testosterónom v dospelosti majú prepubertálni NoT@P kastrovaní najmenej 50 % deficit v maskulínnom správaní v porovnaní s samcami kastrovanými po adolescencii ( obr. 3 , Schulz, Richardson, Zehr, Osetek, Menard a Sisk, 2004 ). Navyše, deficity v reprodukčnom správaní sú dlhodobé a nemožno ich prekonať ani dlhodobou liečbou testosterónom, ani sexuálnymi skúsenosťami v dospelosti ( Schulz a kol., 2004 ). Podobne po liečbe estrogénom a progesterónom vykazujú samci NoT@P kratšiu latenciu lordózy a dlhšie trvanie lordózy ako samce kastrované v dospelosti ( Schulz a kol., 2004 ), čo naznačuje, že prepubertálni kastrovaní sú menej defeminizovaní ako samce vystavené pubertálnemu testosterónu.

Obr. 3
Je možné, že samci NoT@P trpia zníženou sexuálnou motiváciou. Jedným zo spôsobov, ako túto otázku zodpovedať, je porovnať latencie potrebné na zapojenie sa do anogenitálneho vyšetrovania (AGI) a rastu u samcov, ktorým bola vykonaná gonadektomia pred (NoT@P) a po puberte (T@P). Ak je sexuálna motivácia závislá od expozície gonádovým hormónom počas dospievania, predpokladali by sme dlhšie latencie potrebné na zapojenie sa do sexuálneho správania u samcov NoT@P. V skutočnosti pri opakovanom vystavení sa samiciam v estri trvá samcom NoT@P dlhšie, kým začnú s AGI a rastom v porovnaní so samcami T@P ( obr. 4 ). Zdá sa teda, že okrem organizačných aspektov sexuálneho výkonu sa zdá, že pubertálne hormóny organizujú aj odmeňujúce aspekty sexuálneho správania. Na podporu tejto možnosti centrálne podávanie agonistu DA apomorfínu v dospelosti obnovuje rastové správanie samcov NoT@P na úrovne typické pre dospelých, čo naznačuje, že testosterón počas dospievania normálne organizuje dopaminergné nervové okruhy (Salas-Ramirez, Montalto a Sisk, 2006). Napriek tomu zostáva mnoho zaujímavých otázok. Vyvíjal by sa samec NoT@P tlak na samicu v ruji alebo by si vyvinul podmienenú preferenciu miesta párenia? Budúci výskum preskúma úlohu pubertálnych hormónov pri organizovaní sexuálnej motivácie a sexuálneho výkonu.

Obr. 4
Latencie a trvania anogenitálneho vyšetrenia (AGI) u samcov škrečkov, ktorým bola vykonaná gonadektómia pred pubertou (NoT@P) alebo po puberte (T@P). Všetci samci boli v dospelosti 7 týždňov po gonadektómii a jeden týždeň pred prvým behaviorálnym testom primárne očkovaní testosterónom. A. Samce T@P vykazovali podobné latencie AGI v troch testoch s estrálnou samicou, zatiaľ čo samce NoT@P zvýšili latenciu AGI počas tretieho testu s estrálnou samicou. B. Samce T@P znížili latenciu pôrodu v troch behaviorálnych testoch s estrálnou samicou, zatiaľ čo samce noT@P nevykazovali žiadnu zmenu v latencii pôrodu v troch behaviorálnych testoch. Tieto údaje naznačujú, že pubertálne gonádové hormóny majú trvalé, uľahčujúce účinky na motiváciu dospelých samcov zapojiť sa do sexuálneho správania so samicou. (Nepublikované údaje od zvieracích subjektov v Schulz, KM, Richardson, HN, Zehr, JL, Osetek, AJ, Menard, TA a Sisk, CL, 2004 ).
Prepubertálne behaviorálne reakcie na steroidy
Jednou z pretrvávajúcich záhad vývoja správania v adolescentnom veku je, prečo je aktivácia reprodukčného správania v reakcii na expozíciu steroidom u prepubertálnych samcov škrečkov utlmená. Ak nízke hladiny androgénov pred pubertou obmedzujú prejavy samčieho sexuálneho správania u prepubertálnych samcov, potom by doplnenie endogénnych androgénov u prepubertálnych samcov malo vyvolať párenie. Ukazuje sa, že to tak nie je ( Meek a kol., 1997 ; Romeo, Cook-Wiens, Richardson a Sisk, 2001 ; Romeo, Wagner, Jansen, Diedrich a Sisk, 2002b ), a to aj napriek skutočnosti, že počet a rozloženie AR a ER v celom páriacom okruhu sú podobné u hormonálne liečených prepubertálnych a dospelých kastrovaných jedincov ( Meek a kol., 1997 ; Romeo, Diedrich a Sisk, 1999 ; Romeo a kol., 2002a ). Preto sa zdá, že androgény a AR sú nevyhnutné, ale nie postačujúce na prejavy samčieho sexuálneho správania.
Úsilie o identifikáciu faktorov, ktoré obmedzujú sexuálnu aktivitu pred pubertou, bolo doteraz zmiešané. Reakcie fosfátov na chemosenzorické signály od samíc v estru sú podobné u prepubertálnych a dospelých samcov škrečkov ( Romeo, Parfitt, Richardson a Sisk, 1998 ). Tieto údaje ukazujú, že mechanizmy senzorickej transdukcie sú zrelé pred pubertou. Mladé samce sú teda schopné detegovať chemosenzorické signály od samíc; líšia sa od dospelých v tom, ako na tieto signály reagujú. Jedným z možných vysvetlení je, že prepubertálne samce nie sú motivované k sexuálnemu správaniu. Zistili sme, že prepubertálne samce škrečkov nevykazujú zvýšené dopaminergné reakcie v MPOA v reakcii na samičie feromóny, zatiaľ čo sexuálne naivné dospelé samce vykazujú robustné dopaminergné reakcie v MPOA na rovnaké stimuly ( obr. 5 , Schulz, Richardson, Romeo, Morris, Lookingland a Sisk, 2003 ). Podobne u prepubertálnych mužov sa po expozícii samičím feromónom nevyskytuje typické zvýšenie hladiny testosterónu v krvnom obehu u dospelých, ale nie u prepubertálnych mužov ( Parfitt, Thompson, Richardson, Romeo a Sisk, 1999 ). Ženské feromóny sa teda javia ako nepodmienený stimul pre neurochemické a neuroendokrinné reakcie u dospelých, ale nie u prepubertálnych mužov, čo naznačuje, že význam týchto spoločensky relevantných senzorických stimulov sa mení v priebehu pubertálneho vývoja, pravdepodobne v súvislosti s nadobudnutím odmeňujúcich vlastností a sexuálnej motivácie. Okrem toho, hoci testosterón uľahčuje AGI u ženy u prepubertálnych mužov, tento účinok závisí od toho, či muž mal predchádzajúcu expozíciu estrálnej samici. Možno prekvapivo, liečba testosterónom znižuje latenciu a predlžuje trvanie AGI iba u sexuálne naivných prepubertálnych mužov ( obr. 6 ). Okrem toho, prepubertálni muži, ktorí mali jednu predchádzajúcu skúsenosť so samicou, vykazujú oveľa dlhšie latencie AGI a kratšie trvanie AGI ako muži, ktorí interagujú s receptívnymi samicami prvýkrát ( obr. 6 ). Tieto údaje naznačujú, že interakcie s estrálnou samicou sú pred pubertou skôr averzívne ako odmeňujúce, čím sa eliminujú akékoľvek uľahčujúce účinky testosterónu na AGI počas následných interakcií so samicou. Bolo by zaujímavé vedieť, či negatívne behaviorálne dôsledky skorého kontaktu s estrálnou samicou pretrvávajú aj v dospievaní a dospelosti, najmä vzhľadom na to, že opakovaný kontakt s estrálnymi samicami počas dospievania vo všeobecnosti uľahčuje prejavy reprodukčného správania samcov ( Molenda-Figueira, Salas-Ramirez, Schulz, Zehr, Montalto a Sisk, 2007 ).

Obr. 5
Dopaminergné reakcie v mediálnej preoptickej oblasti (MPOA) u predpubertálnych a dospelých mužov na ženské feromóny obsiahnuté vo vaginálnych sekrétoch. Dospelí muži vykazujú zvýšenú dopaminergnú aktivitu MPOA s expozíciou ženským vaginálnym sekrétom, zatiaľ čo predpubertálni muži nevykazujú zvýšené dopaminergné reakcie MPOA na ženské feromóny. (Prevzaté zo Schulz, KM, Richardson, HN, Romeo, RD, Morris, JA, Lookingland, KJ a Sisk, CL, 2003 ).

Hoci prepubertálna liečba androgénmi nemôže vyvolať kopuláciu, nedávna práca z nášho laboratória naznačuje, že nervový systém škrečka je citlivý na organizujúce pôsobenie testosterónu na reprodukčné správanie pred adolescenciou ( Schulz, Zehr, Salas-Ramirez a Sisk, 2007 ). Kastrácia plus 19 dní expozície testosterónu pred alebo počas, ale nie po adolescencii, uľahčili narastajúce správanie, keď bol testosterón v dospelosti nahradený. Samce vystavené testosterónu pred pubertou tiež vykazovali v dospelosti viac intromisí ako samce vystavené testosterónu počas alebo po puberte ( Schulz a kol., 2007 ). Tieto údaje naznačujú, že schopnosť testosterónu organizovať behaviorálne nervové okruhy klesá s vekom a že adolescencia predstavuje koniec zdĺhavého postnatálneho citlivého obdobia na expozíciu testosterónu.
Farmakologické androgény
Predchádzajúce údaje naznačujú, že endogénne gonádové steroidy zvyšujú motivované správanie počas dospievania. Čo sa stane, ak si človek sám podáva androgény v hladinách až do 100-násobku normálnych fyziologických koncentrácií? Toto je problém zneužívania anabolicko-androgénnych steroidov (AAS) (prehľad v Brower, 2002 ; Clark a Henderson, 2003 ). Tu je vhodná krátka odbočka: všetky AAS sú deriváty testosterónu, všetky AAS majú uhlíkovú kostru so 4 kondenzovanými kruhmi, väčšina má 19 uhlíkov. AAS sa používajú hlavne pre svoje anabolické (budovanie svalov) účinky. Ako však už ich názov napovedá, AAS majú aj androgénne vlastnosti. Testosterón je logickou voľbou v štúdiách na zvieratách na skúmanie základných mechanizmov odmeny za androgény. Naďalej zostáva obľúbenou voľbou aj pre ľudí, najčastejšie vo forme dlhodobo pôsobiacich esterov testosterónu, ako je testosterón propionát. V roku 2006 bol testosterón najčastejšou zakázanou látkou zistenou v testoch moču v laboratóriách akreditovaných WADA ( WADA, 2006 ). Testosterón tvoril najväčšiu časť (34 %) testov moču s pozitívnym výsledkom AAS na Olympijských hrách v Sydney v roku 2000 ( Van Eenoo a Delbeke, 2003 ). Podobne aj v testoch moču užívateľov AAS malo 41 % pozitívny test na testosterón ( Brower, Catlin, Blow, Eliopulos, Beresford, 1991 ). Vo vysokých dávkach AAS spôsobujú významné zmeny v správaní. Najmä kvôli ich úzkemu vzťahu s testosterónom sa zdá, že užívanie AAS v dospievaní narúša normálne steroidné prostredie vyvíjajúceho sa nervového systému ľudského dospievajúceho človeka, vrátane množstva, načasovania a typu expozície steroidom.
Rovnako ako v prípade iných nelegálnych drog, aj zneužívanie ľudských AAS je problémom dospievania. Podľa Národného prieskumu domácností o užívaní drog z roku 1994 ( SAMHSA/OAS, 1996 ) užívanie steroidov vrcholí v neskorej dospievajúcej dospievajúcej dobe vo veku 18 rokov. Navyše, v prieskume Monitorovanie budúcnosti ( Johnston, O'Malley a Bachman, 2003 ) bol celoživotný výskyt užívania steroidov medzi stredoškolákmi (2.7 %) porovnateľný s výskytom cracku (3.5 %) alebo heroínu (1.4 %). Užívanie steroidov je čoraz častejšie aj v mladšom veku: 2.5 % žiakov 8. ročníka (13 – 14 rokov) užilo steroidy, podobne ako v prípade užívania cracku (2.5 %) a heroínu (1.6 %). Tento trend smerom k užívaniu AAS v ranom dospievaní je obzvlášť znepokojujúci vzhľadom na obavy 1) že adolescenti môžu byť obzvlášť zraniteľní voči zneužívaniu AAS a 2) že vystavenie adolescentov AAS na farmakologických úrovniach má potenciál podstatne zmeniť normálne dozrievanie mozgu a správania, čo môže viesť k prehnaným morfologickým a behaviorálnym reakciám, akútnym aj chronickým.
Nevhodná agresia je behaviorálna reakcia, ktorá sa najčastejšie spája so zneužívaním ľudského AAS. V publikovaných kazuistikách sa užívanie steroidov podieľa na niekoľkých násilných vraždách (Conacher a Workman, 1989; Pápež a Katz, 1990; Pápež, Kouri, Powell, Campbell, a Katz, 1996; Schulte, Hall a Boyer, 1993). V prieskumoch súčasných užívateľov AAS boli zvýšená agresivita a podráždenosť najčastejšími vedľajšími účinkami správania AAS (Bond, Choi a pápež, 1995; Galligani, Renck a Hansen, 1996; Midgley, Heather a Davies, 2001; Parrott, Choi a Davies, 1994; Perry, Kutscher, Lund, Yates, Holman a Demers, 2003). Vzhľadom na rozsah expozícií androgénov, rôznorodosť psychiatrických symptómov a potenciál pre už existujúcu psychiatrickú dysfunkciu je však ťažké určiť presnú úlohu AAS v týchto prípadoch ľudskej agresie. Výsledky prospektívnych štúdií humánnych dobrovoľníkov dostávajúcich injekcie AAS boli zmiešané: \ t Tricker et al (1996) a O'Connor a kol. (2004) nezaznamenali žiadne zvýšenie hnevu, zatiaľ čo iné štúdie pozorovali zvýšenú agresivitu (\ tDaly, Su, Schmidt, Pickar, Murphy a Rubinow, 2001; Hannan, Friedl, Zold, Kettler a Plymate, 1991; Kouri, Lukáš, pápež a Oliva, 1995; Pápež a Katz, 1994; Su, Pagliaro, Schmidt, Pickar, Wolkowitz a Rubinow, 1993). Je však dôležité mať na pamäti, že dávky podávané ľudským dobrovoľníkom sú oveľa nižšie ako dávky odporúčané na webových stránkach na budovanie tela a trvanie liečby je vo všeobecnosti krátke. Na základe rovnováhy sa teda zdá, že je spravodlivé dospieť k záveru, že AAS má potenciál zvýšiť agonistické správanie, aspoň u citlivých jedincov. Pope et al (1994) zistili, že AAS vyvoláva psychiatrické symptómy u zraniteľných jedincov.
Štúdie na zvieratách tiež poskytli presvedčivé dôkazy o agresii vyvolanej AAS. Dospievajúci samci škrečkov chronicky liečení vysokými dávkami steroidov majú kratšiu latenciu útoku a väčší počet útokov a uhryznutí smerom k samcom votrelcov v porovnaní s neliečenými samcami ( Harrison, Connor, Nowak, Nash a Melloni, 2000 ; Melloni, Connor, Hang, Harrison a Ferris, 1997 ). Podobne mierna provokácia (štipnutie za chvost) vyvoláva trvalé zvýšenie agresie u dospievajúcich samcov potkanov vrátane agresie voči samiciam ( Cunningham a McGinnis, 2006 ). Ešte väčšie obavy prináša vystavenie adolescentných škrečkov AAS, ktoré spôsobuje trvalé zvýšenie agonistického správania, ktoré pretrváva aj po ukončení užívania steroidov ( Grimes a Melloni, 2006 ). Tieto zmeny správania sú sprevádzané trvalou prestavbou nervových obvodov v prednom hypotalame. Najmä vystavenie AAS u škrečkov v dospievaní zvyšuje hladinu arginín-vazopresínu (AVP, Grimes a Melloni, 2006 ) a znižuje hladinu serotonínu a serotonergných receptorov 5HT1A a 5HT1B ( Ricci, Rasakham, Grimes a Melloni, 2006 ). Nemalo by byť prekvapením, že AAS menia aj hladiny AR v mozgu. Chronická expozícia testosterónu alebo nandrolónu zvyšuje hladinu AR v bunkách u samcov potkanov ( Menard a Harlan, 1993 ; Wesson a McGinnis, 2006 ). Preto existuje potenciál pre AAS zosilniť androgén-dependentné správanie, a to doplnením endogénnych androgénov a zvýšením androgénnej citlivosti prostredníctvom zvýšenej expresie AR.
V porovnaní s agonistickým správaním majú AAS menej výrazný vplyv na páriace správanie u samcov hlodavcov a odpoveď závisí od konkrétneho použitého steroidu (prehľad u Clark a Henderson, 2003 ). U samcov škrečkov konzumujúcich testosterón v perorálnych roztokoch sa ejakulácia zvyšovala v závislosti od dávky (Wood, 2002). Ani testosterón, ani nandrolón však u dospievajúcich samcov potkanov nezlepšili párenie. Stanozolol, relatívne menej účinný AAS s minimálnou androgénnou aktivitou, v skutočnosti inhiboval párenie aj agresiu (Farrell a McGinnis, 2003), pravdepodobne znížením hladín endogénnych androgénov.
Je obzvlášť dôležité poznamenať, že dospievajúce a dospelé škrečky môžu vykazovať odlišné behaviorálne reakcie na vystavenie sa AAS. Zatiaľ čo AAS výrazne zvýšil agonistické správanie u dospievajúcich samcov, rovnaká liečba v dospelosti viedla len k miernemu zvýšeniu agresívneho správania a výrazne znížila sexuálne správanie ( Salas-Ramirez, Montaldo a Sisk, 2008 ). To je v súlade s koncepciou adolescencie ako citlivého obdobia pre pôsobenie androgénov. Okrem toho, rovnako ako dospelé samce škrečkov získavajú toleranciu na exogénny testosterón ( Peters a Wood, 2005 ), domnievame sa, že vyvíjajúce sa samce získavajú toleranciu na testosterón s dospievaním. Účinky AAS sa teda počas dospievania menia a vystavenie sa AAS u dospievajúcich môže spôsobiť nadmerné agresívne a sexuálne vzorce správania, ktoré môžu pretrvávať až do dospelosti.
Posilňujúce účinky androgénov
Párenie aj boj sú obohacujúce (aspoň ak boj vyhráte). Samce potkanov opakovane stláčajú páku, aby sa párili so samicou ( Everitt a Stacey, 1987 ). Podobne si samce myší a samice škrečkov vytvoria podmienenú preferenciu miesta (CPP) pre miesta, kde predtým vyhrali súboje ( Martinez, Guillen-Salazar, Salvador a Simon, 1995 ; Meisel a Joppa, 1994 ). Ak AAS dokáže zvýšiť odmeňujúce sociálne správanie nad úrovne bežne pozorované u samcov s intaktnými gonádami, je logické očakávať, že samotný testosterón by mohol byť odmeňujúci. Toto bolo testované s použitím dvoch dobre zavedených zvieracích modelov pre odmenu a posilnenie: CPP a samopodávanie. Výsledky týchto štúdií ukazujú, že testosterón je posilňujúci v experimentálnom kontexte, kde anabolické účinky a atletický výkon nie sú relevantné. Pri CPP sa testovaná látka opakovane spáruje s jedinečným prostredím (napríklad s konkrétnou komorou v testovacom zariadení). Keď si zviera spojí posilňujúcu testovaciu látku s týmto prostredím, bude vyhľadávať toto prostredie aj bez odmeny. Prvé správy o odmene za androgény u laboratórnych zvierat používali systémové injekcie testosterónu na indukciu CPP u samcov myší ( Arnedo, Salvador, Martinez-Sanchis a Gonzalez-Bono, 2000 ; Arnedo, Salvador, Martinez-Sanchis a Pellicer, 2002 ) a potkanov ( Alexander, Packard a Hines, 1994 ; de Beun, Jansen, Slangen a Van de Poll, 1992 ). Následne naše laboratórium použilo samopodávanie testosterónu na preukázanie posilnenia androgénov ( Johnson a Wood, 2001 ). Zistili sme, že samce škrečkov dobrovoľne konzumujú perorálne roztoky testosterónu pomocou testov výberu dvoch fliaš aj pitia vyvolaného potravou. V neskorších štúdiách sme preukázali i.v. samopodávanie u samcov potkanov a škrečkov ( Wood, Johnson, Chu, Schad a Self, 2004 ). Intravenózne podanie eliminuje potenciálne mätúce účinky chuti alebo plnenia čriev na príjem androgénov.
V kontexte zneužívania AAS je dôležité rozlišovať medzi centrálnymi a periférnymi účinkami androgénov. Keďže testosterón má rozsiahle účinky v celom tele, dalo by sa tvrdiť, že odmena a posilnenie systémovými injekciami testosterónu sú druhoradé k systémovým anabolickým a androgénnym účinkom testosterónu. Inými slovami, možno testosterón znižuje svalovú únavu a zlepšuje funkciu kĺbov, takže sa zvieratá jednoducho cítia lepšie. Toto vysvetlenie sa v klinickej literatúre skutočne používa (hoci bez experimentálnych dôkazov) na argumentovanie proti potenciálu závislosti a návyku na AAS ( DiPasquale, 1998 ). Packard a kol. ( Packard, Cornell a Alexander, 1997 ) však ukázali, že injekcie testosterónu priamo do mozgu potkana môžu vyvolať CPP. Podobne naše laboratórium preukázalo intracerebroventrikulárne (icv) samopodávanie testosterónu u samcov škrečkov ( Wood a kol., 2004 ). Intracerebrálne CPP a icv samopodávanie s testosterónom svedčia o centrálnych cieľoch sprostredkujúcich posilnenie androgénov.
Je pozoruhodné, že posilňovanie testosterónom nemusí nevyhnutne nasledovať rovnaké mechanizmy, aké boli predtým stanovené pre účinky steroidov na sexuálne správanie. Ako už bolo spomenuté, MPOA je kľúčovým miestom pre organizáciu sexuálneho správania samcov hlodavcov ( Hull, Meisel a Sachs, 2002 ). U škrečkov má MPOA množstvo steroidných receptorov a testosterónové implantáty v MPOA obnovujú sexuálnu aktivitu u dlhodobo kastrovaných jedincov ( Wood a Swann, 1999 ). Časový priebeh týchto steroidných účinkov je pomalý: narastajúce správanie pretrváva celé týždne po orchidektómii a na obnovenie párenia u dlhodobo kastrovaných je nevyhnutná dlhodobá expozícia steroidom ( Noble a Alsum, 1975 ). Injekcie testosterónu do MPOA samcov potkanov však neindukujú CPP ( King, Packard a Alexander, 1999 ). To naznačuje, že pre posilňovanie androgénov sú dôležité aj iné oblasti mozgu.
Naproti tomu samce potkanov vytvoria CPP po injekciách testosterónu v Acb ( Packard a kol., 1997 ). Rovnako ako pri iných drogách, aj DA je pravdepodobne kľúčovým neurotransmiterom pre posilnenie testosterónu: CPP indukovaná systémovou injekciou testosterónu je blokovaná antagonistami dopamínových receptorov D1 a D2 ( Schroeder a Packard, 2000 ). Na rozdiel od iných drog však naše štúdie na škrečkoch naznačujú, že testosterón neindukuje uvoľňovanie Acb DA ( Triemstra, Sato a Wood, v tlači ). Podobne štúdie na samcoch potkanov ukazujú, že androgény nemajú žiadny vplyv na bazálne hladiny DA ani na uvoľňovanie DA stimulované amfetamínom ( Birginer, Kindlundh-Hogberg, Nyberg a Bergstrom, 2006 ; ale pozri aj Clark, Lindenfeld a Gibbons, 1996 ). Okrem toho má testosterón relatívne malý vplyv na hladiny Acb DA v tkanive ( Thiblin, Finn, Ross a Stenfors, 1999 ). Tieto údaje spoločne naznačujú, že hoci posilnenie testosterónom môže v konečnom dôsledku zmeniť aktivitu DA v Acb, mechanizmy sa môžu líšiť od mechanizmov kokaínu alebo iných stimulantov. V tomto ohľade nedávne údaje naznačujú, že chronická expozícia AAS môže zmeniť citlivosť na DA zmenou metabolizmu DA ( Kurling, Kankaanpaa, Ellermaa, Karila a Seppala, 2005 ), hladín DA receptorov ( Kindlundh, Lindblom, Bergstrom, Wikberg a Nyberg, 2001 ; Kindlundh, Lindblom a Nyberg, 2003 ) alebo DA transportéra ( Kindlundh, Bergstrom, Monazzam, Hallberg, Blomqvist, Langstrom a Nyberg, 2002 ).
V súčasnosti nie sú známe špecifické steroidné signály, receptory a miesta pôsobenia testosterónu v mozgu, ktoré posilňujú jeho účinok. Na základe nedávnej štúdie škrečkov z nášho laboratória sa zdá, že posilňujúce účinky testosterónu sú sprostredkované androgénmi aj estrogénmi ( DiMeo a Wood, 2006 ). Medzi bežne zneužívané AAS patria aromatizovateľné aj nearomatizovateľné androgény ( Gallaway, 1997 ; WADA, 2006 ). To naznačuje, že AR aj ER môžu prenášať steroidné stimuly za účelom odmeny. Existuje ďalšia možnosť, že posilnenie testosterónu môže byť sprostredkované kombináciou klasických a negenómových receptorov.
Niekoľko dôkazov poukazuje na pôsobenie negenómových receptorov v posilňujúcich účinkoch AAS. Okrem riedkeho rozloženia AR v Acb a VTA je časový priebeh posilňovania androgénov rýchly (<30 min) a spracovanie signálu prostredníctvom klasického AR nemusí byť dostatočne rýchle na posilnenie. Preto sme na testovanie úlohy negenómového AR v posilňovaní AAS použili dve komplementárne techniky ( obr. 7 ). V jednom experimente ( Sato, Johansen, Jordan a Wood, 2006 ) sme umožnili potkanom s mutáciou testikulárnej feminizácie (Tfm, pozri toto číslo) samým si podať dihydrotestosterón (DHT), nearomatizovateľný androgén. Mutácia Tfm výrazne znižuje väzbu ligandu na AR. Napriek tomu si potkany Tfm a ich súrodenci samčieho typu divokého typu sami podávali približne rovnaké množstvo DHT. To svedčí o negenómových účinkoch DHT. V následnej štúdii sme zistili, či by si samce škrečkov samy podávali DHT konjugovaný s hovädzím sérovým albumínom (BSA, obr. 8 , Sato a Wood, 2007 ). Konjugáty DHT-BSA sú nepriepustné pre membránu, preto sú ich účinky obmedzené na povrch bunky. Škrečky si sami podávali DHT, ako bolo predtým preukázané ( DiMeo a Wood, 2006 ). Preukázali podobnú preferenciu pre konjugáty DHT-BSA, ale nepodali si samotný BSA.

Obr. 7

Obr. 8
Tieto údaje poukazujú na ústrednú úlohu bunkových povrchových receptorov (AR) pri posilňovaní androgénov. V súčasnosti nie je presná povaha takýchto receptorov známa. Predpokladá sa, že androgény môžu pôsobiť na bunkovom povrchu väzbou na vyhradený membránový AR ( Thomas, Dressing, Pang, Berg, Tubbs, Benninghoff a Doughty, 2006 , pozri aj toto číslo). Môže to byť vo forme extranukleárneho klasického AR, ako sa uvádza v hipokampe (Sarkey a kol., v tomto čísle). Alternatívne, predchádzajúce štúdie tiež opísali väzbové miesta pre steroidy na iných neurotransmiterových systémoch. Konkrétne, rôzne steroidné hormóny vrátane AAS môžu alostericky modulovať receptor GABA-A ( Henderson, 2007 ; Lambert, Belelli, Peden, Vardy a Peters, 2003 ). Podobne, sulfátované neurosteroidy môžu modifikovať aktivitu podtypov receptorov N -metyl- D -aspartátu ( Malayev, Gibbs a Farb, 2002 ). Toto je dôležitá oblasť pre budúci výskum.
Prečo by mala byť membránová AR? Ako už bolo uvedené, existuje úzka súvislosť medzi vylučovaním androgénu a odmeňovaním sociálneho správania. Môžeme špekulovať, že zvýšenie sekrécie testosterónu, ktoré nasleduje po párení alebo boji, slúži na posilnenie správania. Ak áno, je potrebné mať rýchle spojenie stimulu (správania) a odmeny (testosterónu). To sa dá najlepšie dosiahnuť väzbou na membránu AR. V tomto ohľade by bolo zaujímavé určiť, či upchávanie sekrécie androgénu počas párenia znižuje odmeňujúce účinky sexuálneho správania.
zhrnutie
Tu uvádzame dôkazy o tom, že androgény sú silnými mediátormi dospelého motivovaného správania, a ďalej, že načasovanie expozície androgénu počas rozvojových programov závisí od motivovaného správania závislého od androgénu v dospelosti. Anabolické steroidy sa rýchlo stávajú obľúbenou drogou zneužívania u adolescentov v USA. Kým AAS nemusí mať návykovú silu kokaínu alebo heroínu, práve začíname chápať potenciál pre posilnenie androgénov a závislosť. Najmä vzhľadom na to, že šport mládeže sa stáva konkurencieschopnejším, narastá tlak na vyvíjajúcich sa športovcov, aby používali steroidy od mladšieho veku. Tento trend je znepokojujúci vzhľadom na nové dôkazy o neuronálnom dozrievaní citlivom na steroidy u adolescentov.
Napriek zvýšenému povedomiu verejnosti aj vedeckých komunít o hlbokých neurálnych zmenách sprevádzajúcich adolescenciu je experimentálne štúdium vývojovej neurobiológie puberty obmedzené. Na preskúmanie toho, ako načasovanie vystavenia hormónom počas vývinu zvyšuje riziko psychopatológie a užívania drog u jednotlivca a aké typy skúseností zmierňujú alebo zosilňujú behaviorálne účinky odchýlok v načasovaní puberty, sú potrebné zvieracie modely adolescentného vývoja. Napríklad sociálne faktory, ako je vplyv rovesníkov, zhoršujú účinky načasovania puberty na užívanie návykových látok a alkoholu ( Biehl, Natsuaki a Ge, 2007 ; Patton, Novy, Lee a Hickok, 2004 ; Simons-Morton a Haynie, 2003 ; Wichstrom a Pedersen, 2001 ). Zvieracie modely načasovania puberty tiež ovplyvnia výskumné úsilie u ľudí a potenciálne povedú k účinnejším terapeutickým intervenciám počas adolescencie.
Poďakovanie
Ďakujeme Eleni Antzoulatos, Cortney Ballard, Lucy Chu, Kelly Peters, Jennifer Triemstra, Jane Venier, Lisa Rogers a Pamela Montalto za pomoc pri týchto štúdiách. Táto práca bola podporená grantmi z NIH (DA12843 na RIW, MH68764 na CLS a MH070125 na KMS).
poznámky pod čiarou
Vyhlásenie vydavateľa: Toto je súbor PDF s neupraveným rukopisom, ktorý bol prijatý na publikovanie. Ako službu našim zákazníkom poskytujeme túto skorú verziu rukopisu. Rukopis prejde korektúrou, sadzbou a kontrolou výslednej korektúry pred publikovaním v konečnej citovateľnej podobe. Upozorňujeme, že počas produkčného procesu sa môžu objaviť chyby, ktoré by mohli ovplyvniť obsah, a vzťahujú sa naň všetky právne upozornenia týkajúce sa časopisu.
Referencie
- Alexander GM, Packard MG, Hines M. Testosterón odmeňuje afektívne vlastnosti u samcov potkanov: dôsledky pre biologický základ sexuálnej motivácie. Behavioral Neuroscience. 1994;108: 424-8. [PubMed]
- Andersen SL. Trajektórie vývoja mozgu: bod zraniteľnosti alebo okne príležitosti? Neurovedy a biobehaviorálne recenzie. 2003;27: 3-18. [PubMed]
- Andersen SL, Rutstein M, Benzo JM, Hostetter JC, Teicher MH. Pohlavné rozdiely v nadmernej produkcii a eliminácii dopamínových receptorov. Neuroreport. 1997;8: 1495-8. [PubMed]
- Arnedo MT, Salvador A, Martinez-Sanchis S, González-Bono E. Odmeňujúce vlastnosti testosterónu u intaktných samcov myší: pilotná štúdia. Farmakológia, biochémia a správanie. 2000;65: 327-32.
- Arnedo MT, Salvador A, Martinez-Sanchis S, Pellicer O. Podobné odmeňujúce účinky testosterónu u myší hodnotených ako jedinci s krátkou a dlhou dobou trvania. Závislosť Biológia. 2002;7: 373-9. [PubMed]
- Arnold AP, Breedlove SM. Organizačné a aktivačné účinky pohlavných steroidov na mozog a správanie: reanalýza. Hormóny a správanie. 1985;19: 469-98. [PubMed]
- Benes FM, Taylor JB, Cunningham MC. Konvergencia a plasticita monoaminergných systémov v mediálnom prefrontálnom kortexe počas postnatálneho obdobia: implikácie pre rozvoj psychopatológie. Mozgová kôra. 2000;10: 1014-27. [PubMed]
- Benes FM, korytnačka M, Chán Y, Farol P. Myelinizácia kľúčovej reléovej zóny v hipokampálnej formácii sa vyskytuje v ľudskom mozgu v detstve, dospievaní a dospelosti. Archívy všeobecnej psychiatrie. 1994;51: 477-84. [PubMed]
- Biehl MC, Natsuaki MN, Ge XJ. Vplyv pubertálneho načasovania na konzumáciu alkoholu a trajektórie ťažkého pitia. Časopis mládeže a dospievania. 2007;36: 153-167.
- Birgner C, Kindlundh-Hogberg AM, Nyberg F, Bergstrom L. Neuroscience Letters. 2006. Zmenené extracelulárne hladiny DOPAC a HVA v jadre potkana sa akumulujú v reakcii na sub-chronické nandrolonové podanie a následnú stimuláciu amfetamínom.
- Bond AJ, Choi PY, pápež HG., Jr Hodnotenie zaujatosti a nálady pozornosti u užívateľov a neužívateľov anabolických androgénnych steroidov. Závislosť od drog a alkoholu. 1995;37: 241-5. [PubMed]
- Brower KJ. Anabolické steroidy a závislosť. Aktuálne správy o psychiatrii. 2002;4: 377-87. [PubMed]
- Brower KJ, Catlin DH, Blow FC, Eliopulos GA, Beresford TP. Klinické hodnotenie a testovanie moču na anabolické androgénne užívanie steroidov a závislosť. American Journal of Drug & Alcohol Abuse. 1991;17: 161-171. [PubMed]
- Celotti F, Negri-Cesi P, Poletti A. Metabolizmus steroidov v mozgu cicavcov: 5alpha-redukcia a aromatizácia. Brain Research Bulletin. 1997;44: 365-75. [PubMed]
- Chung WC, De Vries GJ, Swaab DF. Sexuálna diferenciácia jadra lôžka terminálu stria u ľudí sa môže rozšíriť do dospelosti. Journal of Neuroscience. 2002;22: 1027-33. [PubMed]
- Clark AS, Henderson LP. Behaviorálne a fyziologické reakcie na anabolické androgénne steroidy. Neurovedy a biobehaviorálne recenzie. 2003;27: 413-36. [PubMed]
- Clark AS, Lindenfeld RC, Gibbons CH. Anabolické androgénne steroidy a odmena mozgu. Farmakológia, biochémia a správanie. 1996;53: 741-5.
- Conacher GN, Workman DG. Násilný trestný čin súvisiaci s užívaním anabolických steroidov. American Journal of Psychiatry. 1989;146: 679. [PubMed]
- Cunningham RL, McGinnis MY. Fyzická provokácia pubertálnych anabolických androgénnych steroidmi vystavených samcov potkanov vyvoláva agresiu voči ženám. Hormóny a správanie. 2006;50: 410-6. [PubMed]
- Daly RC, Su TP, Schmidt PJ, Pickar D, Murphy DL, Rubinow DR. Cerebrospinálna tekutina a zmeny správania po podaní metyltestosterónu: predbežné zistenia. Archívy všeobecnej psychiatrie. 2001;58: 172-7. [PubMed]
- Davis EC, Shryne JE, Gorski RA. Štrukturálne sexuálne dimorfizmy v anteroventrálnom periventrikulárnom jadre potkanieho hypotalamu sú citlivé na gonádové steroidy perinatálne, ale vyvíjajú sa peripubertálne. Neuroendokrinologie. 1996;63: 142-8. [PubMed]
- de Beun R, Jansen E, Slangen JL, Van de Poll NE. Testosterón ako apetitívny a diskriminačný stimul u potkanov: účinky závislé od pohlavia a dávky. Fyziológia a správanie. 1992;52: 629-34. [PubMed]
- Dekaban AS. Zmeny hmotnosti mozgu v priebehu ľudského života: vzťah hmotnosti mozgu k telesnej výške a telesnej hmotnosti. Annals of Neurology. 1978;4: 345-56. [PubMed]
- Di Chiara G, Imperato A. Lieky zneužívané ľuďmi prednostne zvyšujú koncentrácie synaptických dopamínov v mezolimbickom systéme voľne sa pohybujúcich potkanov. Zborník Národnej akadémie vied Spojených štátov amerických. 1988;85: 5274-8. [Článok bez PMC] [PubMed]
- DiMeo AN, Wood RI. Samostatné podávanie estrogénu a dihydrotestosterónu u samcov škrečkov. Hormóny a správanie. 2006;49: 519-26. [PubMed]
- DiPasquale M. Anabolické steroidy. V: Tarter RE, Ammerman RT, Ott PJ, redaktori. Príručka zneužívania látok. Plenum Press; NY: 1998. s. 547 – 565.
- Dominguez J, Riolo JV, Xu Z, Hull EM. Regulácia prostredníctvom mediálnej amygády kopulácie a mediálneho predoptického uvoľňovania dopamínu. Journal of Neuroscience. 2001;21: 349-355. [PubMed]
- Dominguez JM, Hull EM. Stimulácia mediálnej amygdaly zlepšuje uvoľňovanie mediálneho preoptického dopamínu: dôsledky pre sexuálne správanie samcov potkanov. Brain Research. 2001;917: 225-229. [PubMed]
- Du J, Lorrain DS, Hull EM. Kastrácia znižuje extracelulárny stav, ale zvyšuje intracelulárny dopamín v mediálnej preoptickej oblasti samcov potkanov. Brain Research. 1998;782: 11-17. [PubMed]
- Eckenhoff MF, Rakic P. Príroda a osud proliferatívnych buniek v hipokampálnom dentálnom gýri počas života opice rhesus. Journal of Neuroscience. 1988;8: 2729-47. [PubMed]
- Everitt BJ, Stacey P. Štúdium inštrumentálneho správania se sexuálnou podporou u samcov potkanov (Rattus norvegicus): II. Účinky lézií preoptickej oblasti, kastrácie a testosterónu. Časopis komparatívnej psychológie. 1987;101: 407-19. [PubMed]
- Gallaway S. Biblia Steroid. Belle International Press; Sacramento, CA: 1997.
- Galligani N, Renck A, Hansen S. Profil osobnosti mužov používajúcich anabolické androgénne steroidy. Hormóny a správanie. 1996;30: 170-5. [PubMed]
- Grimes JM, Melloni RH., Jr Predĺžené zmeny v serotonínovom nervovom systéme po zastavení expozície adolescentných anabolických androgénnych steroidov u škrečkov (Mesocricetus auratus) Behavioral Neuroscience. 2006;120: 1242-51. [PubMed]
- Hannan CJ, Jr, Friedl KE, Zold A, Kettler TM, Plymate SR. Psychologické zmeny a zmeny v sérovej homovanillovej kyseline u mužov, ktorým sa podávali androgénne steroidy. Psychoneuroendocrinology. 1991;16: 335-43. [PubMed]
- Harrison RJ, Connor DF, Nowak C, Nash K, Melloni RH., Jr Chronická anabolicko-androgénna liečba steroidmi počas dospievania zvyšuje predný hypotalamický vazopresín a agresiu u intaktných škrečkov. Psychoneuroendocrinology. 2000;25: 317-38. [PubMed]
- On J, Crews FT. Neurogenéza klesá počas dozrievania mozgu z dospievania do dospelosti. Farmakológia, biochémia a správanie. 2007;86: 327-33.
- Henderson LP. Steroidná modulácia prenosu sprostredkovaného receptorom GABAA v hypotalame: účinky na reprodukčnú funkciu. Neuropharmacology. 2007;52: 1439-53. [Článok bez PMC] [PubMed]
- Hull EM, Du J, Lorrain DS, Matuszewich L. Extracelulárny dopamín v mediálnej preoptickej oblasti: dôsledky sexuálnej motivácie a hormonálnej kontroly kopulácie. Journal of Neuroscience. 1995;15: 7465-7471. [PubMed]
- Hull EM, Meisel RL, Sachs BD. Mužské sexuálne správanie. In: Pfaff DW, Arnold AP, Etgen AM, Fahrbach SE, Rubin RT, redaktori. Hormóny, mozog a správanie. Akademická tlač; New York: 2002. s. 3 – 137.
- Hull EM, Wood RI, McKenna KE. Neurobiológia mužského sexuálneho správania. In: Neill JD, editor. Fyziológia reprodukcie. Vol. 1. Elsevier Press; New York: 2006. s. 1729 – 1824.
- Huttenlocher PR, Dabholkar AS. Regionálne rozdiely v synaptogenéze v ľudskej mozgovej kôre. Journal of Comparative Neurology. 1997;387: 167-78. [PubMed]
- Johnson LR, Wood RI. Perorálne samo-podávanie testosterónu u samcov škrečka. Neuroendokrinologie. 2001;73: 285-92. [PubMed]
- Johnston LD, O'Malley PM, Bachman JG. Študenti stredných škôl (NIH číslo publikácie 03 – 5375) I. Bethesda, MD: Národný inštitút pre zneužívanie drog; 2003. Monitorovanie výsledkov národného prieskumu o budúcnosti užívania drog, 1975 – 2002.
- Kaiser Family Foundation. Sexuálna aktivita v USA. 2005. pp. # 3040 – 02.
- Kashon ML, Hayes MJ, Shek PP, Sisk CL. Regulácia imunoreaktivity mozgového androgénneho receptora androgénom u prepubertálnych samcov fretiek. Biológia reprodukcie. 1995;52: 1198-205. [PubMed]
- Kindlundh AM, Bergstrom M, Monazzam A, Hallberg M, Blomqvist G, Langstrom B, Nyberg F. Dopaminergné účinky po chronickej liečbe nandrolonom vizualizovaným v mozgu potkana pozitrónovou emisnou tomografiou. Pokrok v neuro-psychofarmakológii a biologickej psychiatrii. 2002;26: 1303-8.
- Kindlundh AM, Lindblom J, Bergstrom L, Wikberg JE, Nyberg F. Anabolicko-androgénny steroid nandrolon dekanoát ovplyvňuje hustotu dopamínových receptorov v mozgu samca potkana. European Journal of Neuroscience. 2001;13: 291-6. [PubMed]
- Kindlundh AM, Lindblom J, Nyberg F. Chronické podávanie s nanoprolónom dekanoátu indukuje zmeny v obsahu génu-transkriptu dopamínových D (1) - a D (2) -receptorov v mozgu potkana. Brain Research. 2003;979: 37-42. [PubMed]
- King BE, Packard MG, Alexander GM. Afektívne vlastnosti intra-mediálnych preoptických oblastí injekcií testosterónu u samcov potkanov. Neuroscience Letters. 1999;269: 149-52. [PubMed]
- Koob GF, Nestler EJ. Neurobiológia drogovej závislosti. Journal of Neuropsychiatry & Clinical Neurosciences. 1997;9: 482-97. [PubMed]
- Kouri EM, Lukas SE, pápež HG, Jr, Oliva PS. Zvýšená agresívna odpoveď u mužských dobrovoľníkov po podaní postupne sa zvyšujúcich dávok testosterónu cypionátu. Závislosť od drog a alkoholu. 1995;40: 73-9. [PubMed]
- Kritzer MF. Dlhodobá gonadektómia ovplyvňuje hustotu tyrozínhydroxylázovej, ale nie dopamín-beta-hydroxylázovej, cholín acetyltransferázovej alebo serotonínovej imunoreaktívnej axónov v mediálnych prefrontálnych kortikách dospelých samcov potkanov. Mozgová kôra. 2003;13: 282-296. [PubMed]
- Kurling S, Kankaanpaa A, Ellermaa S, Karila T, Seppala T. Účinok sub-chronickej nano-nanolovej dekanoátovej liečby na dopaminergné a serotonergné neurónové systémy v mozgoch potkanov. Brain Research. 2005;1044: 67-75. [PubMed]
- Lambert JJ, Belelli D, Peden DR, Vardy AW, Peters JA. Neurosteroidná modulácia receptorov GABAA. Pokrok v neurobiológii. 2003;71: 67-80. [PubMed]
- Lenroot RK, Giedd JN. Vývoj mozgu u detí a dospievajúcich: poznatky z anatomickej magnetickej rezonancie. Neuroveda a biobehaviorálne hodnotenie. 2006;30: 718-29.
- Lesting J, Neddens J, Teuchert-Noodt G. Ontogenéza inaminácie dopamínu v nucleus accumbens gerbilov. Brain Research. 2005;1066: 16-23. [PubMed]
- Malayev A, Gibbs TT, Farb DH. Inhibícia NMDA reakcie pregnenolón sulfátom odhaľuje subtyp selektívnu moduláciu NMDA receptorov sulfátovými steroidmi. British Journal of Pharmacology. 2002;135: 901-9. [Článok bez PMC] [PubMed]
- Martinez M, Guillen-Salazar F, Salvador A, Simon VM. Úspešná intermale agresia a preferované miesto u myší. Fyziológia a správanie. 1995;58: 323-8. [PubMed]
- Meek LR, Romeo RD, Novak CM, Sisk CL. Účinky testosterónu v prepubertálnych a postpubertálnych mužských škrečkoch: disociácia účinkov na reprodukčné správanie a imunoreaktivitu mozgového androgénneho receptora. Hormóny a správanie. 1997;31: 75-88.
- Meisel RL, Joppa MA. Podmienečné preferencie miesta u škrečkov po agresívnych alebo sexuálnych stretnutiach. Fyziológia a správanie. 1994;56: 1115-8. [PubMed]
- Melloni RH, Jr, Connor DF, Hang PT, Harrison RJ, Ferris CF. Expozícia anabolických androgénnych steroidov počas adolescencie a agresívneho správania u zlatých škrečkov. Fyziológia a správanie. 1997;61: 359-64. [PubMed]
- Menard C, Harlan R. Upregulácia imunoreaktivity receptora androgénu v mozgu potkana androgénnymi anabolickými steroidmi. Brain Research. 1993;622: 226-236. [PubMed]
- Mermelstein PG, Becker JB, Surmeier DJ. Estradiol znižuje vápnikové prúdy u neostriálnych neurónov potkanov cez membránový receptor. Journal of Neuroscience. 1996;16: 595-604. [PubMed]
- Midgley SJ, Heather N, Davies JB. Úrovne agresie medzi skupinou užívateľov anabolických androgénnych steroidov. Medicína, veda a právo. 2001;41: 309-14.
- Molenda-Figueira HN, Salas-Ramirez KY, Schulz KM, Zehr JL, Montalto PR, Sisk CL. Dospievajúci sociálna skúsenosť obnovuje ejakulačné správanie dospelých u samčích škrečkov, ktorým chýba pubertálny testosterón. Spoločnosť pre behaviorálnu neuroendokrinológiu; Pacific Grove, CA: 2007.
- Noble RG, Alsum PB. Hormonálne závislé pohlavné dimorfizmy v zlatom škrečkovi (Mesocricetus auratus) Fyziológia a správanie. 1975;14: 567-74. [PubMed]
- Nunez JL, Lauschke DM, Juraska JM. Bunková smrť pri vývoji zadnej kortexu u samcov a samíc potkanov. Journal of Comparative Neurology. 2001;436: 32-41. [PubMed]
- Nunez JL, Sodhi J, Juraska JM. Vaječníkové hormóny po postnatálnom dni 20 znižuje počet neurónov v primárnej vizuálnej kôre potkana. Journal of Neurobiology. 2002;52: 312-21. [PubMed]
- O'Connor DB, Archer J, Wu FC. Účinky testosterónu na náladu, agresiu a sexuálne správanie u mladých mužov: dvojito zaslepená, placebom kontrolovaná, krížová štúdia. Journal of Clinical Endocrinology & Metabolism. 2004;89: 2837-45. [PubMed]
- Packard MG, Cornell AH, Alexander GM. Odmeňovanie afektívnych vlastností intra-nucleus accumbens injekcií testosterónu. Behavioral Neuroscience. 1997;111: 219-24. [PubMed]
- Parfitt DB, Thompson RC, Richardson HN, Romeo RD, Sisk CL. GnRH mRNA sa zvyšuje s pubertou v mozgu mužského sýrskeho škrečka. Journal of Neuroendokrinology. 1999;11: 621-7. [PubMed]
- Parrott AC, Choi PY, Davies M. Anabolické užívanie steroidov amatérskymi športovcami: účinky na psychologické stavy nálady. Journal of Sports Medicine & Physical Fitness. 1994;34: 292-8. [PubMed]
- Patton PE, Nový MJ, Lee DM, Hickok LR. Diagnóza a reprodukčný výsledok po chirurgickej liečbe kompletnej septálnej maternice, duplikovaného krčka maternice a vaginálnej priehradky. American Journal of Obstetrics & Gynecology. 2004;190: 1669-75. 1675-8. [PubMed]
- Paus T, Collins DL, Evans AC, Leonard G, Pike B, Zijdenbos A. Zretie bielej hmoty v ľudskom mozgu: prehľad štúdií magnetickej rezonancie. Brain Research Bulletin. 2001;54: 255-66. [PubMed]
- Perry PJ, Kutscher EC, Lund BC, Yates WR, Holman TL, Demers L. Merania agresivity a zmeny nálady u mužských vzpieračov s použitím androgénnych anabolických steroidov a bez nich. Journal of Forensic Sciences. 2003;48: 646-51. [PubMed]
- Peters KD, Wood RI. Androgénna závislosť u škrečkov: predávkovanie, tolerancia a potenciálne opioidergické mechanizmy. Neuroscience. 2005;130: 971-81. [PubMed]
- Pfaus JG, Damsma G, Nomikos GG, Wenkstern DG, Blaha CD, Phillips AG, Fibiger HC. Sexuálne správanie zvyšuje centrálny prenos dopamínu u samcov potkanov. Brain Research. 1990;530: 345-348. [PubMed]
- Phoenix CH, Goy RW, Gerall AA, Young WC. Usporiadanie účinku prenatálne podávaného propionátu testosterónu na tkanivá sprostredkujúce párovacie správanie u samíc morčiat. Endocrinology. 1959;65: 369-82. [PubMed]
- Pinos H, Collado P, Rodriguez-Zafra M, Rodriguez C, Segovia S, Guillamon A. Vývoj pohlavných rozdielov v locus coeruleus potkana. Brain Research Bulletin. 2001;56: 73-8. [PubMed]
- Pápež HG, Jr, Katz DL. Zabitie a zabitie zo strany užívateľov anabolických steroidov [pozri komentár] Journal of Clinical Psychiatry. 1990;51: 28-31. [PubMed]
- Pápež HG, Jr, Katz DL. Psychické a medicínske účinky užívania anabolických a androgénnych steroidov. Kontrolovaná štúdia športovcov 160. Archívy všeobecnej psychiatrie. 1994;51: 375-82. [PubMed]
- Pope HG, Jr, Kouri EM, Powell KF, Campbell C, Katz DL. Použitie anabolických androgénnych steroidov u väzňov 133. Komplexná psychiatria. 1996;37: 322-7. [PubMed]
- Putnam SK, Du J, Sato S, Hull EM. Obnovenie kopulačného správania testosterónom koreluje s mediálnym preoptickým uvoľňovaním dopamínu u kastrovaných samcov potkanov. Hormóny a správanie. 2001;39: 216-224. [PubMed]
- Putnam SK, Sato S, Hull EM. Účinky metabolitov testosterónu na kopuláciu a uvoľňovanie mediálneho preoptického dopamínu u kastrovaných samcov potkanov. Hormóny a správanie. 2003;44: 419-26. [PubMed]
- Putnam SK, Sato S, Riolo JV, Hull EM. Účinky metabolitov testosterónu na kopuláciu, mediálny preoptický dopamín a NOS-imunoreaktivita u kastrovaných samcov potkanov. Hormóny a správanie. 2005;47: 513-522. [PubMed]
- Rankin SL, Partlow GD, McCurdy RD, Giles ED, Fisher KR. Postnatálna neurogenéza v jadre vazopresínu a oxytocínu hypotalamu ošípaných. Brain Research. 2003;971: 189-96. [PubMed]
- Ricci LA, Rasakham K, Grimes JM, Melloni RH., Jr Serotonin-1A receptorová aktivita a expresia modulujú adolescentnú anabolickú / androgénnu steroidmi indukovanú agresiu u škrečkov. Farmakológia, biochémia a správanie. 2006;85: 1-11.
- Romeo RD, Cook-Wiens E, Richardson HN, Sisk CL. Dihydrotestosterón aktivuje sexuálne správanie u dospelých samcov škrečkov, ale nie u mladých jedincov. Fyziológia a správanie. 2001;73: 579-84. [PubMed]
- Romeo RD, Diedrich SL, Sisk CL. Imunoreaktivita estrogénového receptora u prepubertálnych a dospelých samčích škrečkov. Neuroscience Letters. 1999;265: 167-70. [PubMed]
- Romeo RD, Parfitt DB, Richardson HN, Sisk CL. Feromóny vyvolávajú ekvivalentné hladiny imunoreaktivity Fos u prepubertálnych a dospelých samčích sýrskych škrečkov. Hormóny a správanie. 1998;34: 48-55. [PubMed]
- Romeo RD, Richardson HN, Sisk CL. Puberta a zrenie mužského mozgu a sexuálneho správania: prepracovanie behaviorálneho potenciálu. Neurovedy a biobehaviorálne recenzie. 2002;26: 381-91. [PubMed]
- Romeo RD, Wagner CK, Jansen HT, Diedrich SL, Sisk CL. Estradiol indukuje hypotalamové progesterónové receptory, ale neaktivuje párenie u samcov škrečkov (Mesocricetus auratus) pred pubertou. Behavioral Neuroscience. 2002b;116: 198-205. [PubMed]
- Salas-Ramirez KY, Montalto PR, Sisk CL. Anabolické androgénne steroidy (AAS) odlišne ovplyvňujú sociálne správanie sa u dospievajúcich a dospelých samčích škrečkov. Hormóny a správanie. 2008 v tlači.
- SAMHSA / OAS. Číslo publikácie DHHS (SMA) 1996. 1994 Národný prieskum domácností o zneužívaní drog, hlavné zistenia 1994; s. 96 – 3085.
- SAMHSA / OAS. Výsledky z Národného prieskumu 2004 o užívaní drog a zdraví: Národné zistenia. 2005. NSDUH Séria H-28, publikácia DHHS č. SMA 05 – 4062.
- Sato SM, Johansen J, Jordan CL, Wood RI. Samopodávanie androgénu u potkanov Tfm. 10th Výročné stretnutie spoločnosti pre správanie Neuroendocrinology.2006.
- Sato SM, drevo RI. Samopodávanie membránovo nepriepustných anabolických androgénnych steroidov (aas) u škrečkov syrskej. 11th Výročné stretnutie spoločnosti fof Behavioral Neuroendocrinology.2007.
- Schroeder JP, Packard MG. Úloha subtypov dopamínových receptorov pri získavaní preferencie miesta testosterónu u potkanov. Neuroscience Letters. 2000;282: 17-20. [PubMed]
- Schulte HM, Hall MJ, Boyer M. Domáce násilie spojené so zneužívaním anabolických steroidov. American Journal of Psychiatry. 1993;150: 348. [PubMed]
- Schulz KM, Menard TA, Smith DA, Albers HE, Sisk CL. Expozícia testikulárneho hormónu počas dospievania organizuje správanie bočného značenia a väzbu vazopresínového receptora v laterálnej priehradke. Hormóny a správanie. 2006;50: 477-83. [PubMed]
- Schulz KM, Richardson HN, Romeo RD, Morris JA, Lookingland KJ, Sisk CL. Mediálne preoptické oblasti dopaminergných odpovedí na ženské feromóny sa vyvíjajú počas puberty v mužskom sýrskom škrečkovi. Brain Research. 2003;988: 139-45. [PubMed]
- Schulz KM, Richardson HN, Zehr JL, Osetek AJ, Menard TA, Sisk CL. Gonadálne hormóny maskulinizujú a defeminizujú reprodukčné správanie počas puberty v mužskom sýrskom škrečkovi. Hormóny a správanie. 2004;45: 242-9. [PubMed]
- Schulz KM, Sisk CL. Pubertálne hormóny, dospievajúci mozog a dozrievanie spoločenského správania: Poučenie zo sýrskeho škrečka. Molekulárna a bunková endokrinológia. 2006:254–255. 120–6.
- Schulz KM, Zehr JL, Salas-Ramirez KY, Sisk CL. Plánovač stretnutí neurovied. Sandiego, CA: Spoločnosť pre neurovedy; 2007. Je adolescencia druhým citlivým obdobím pre organizačné účinky testosterónu na dospelé mužské reprodukčné správanie? 2007 Online.
- Scott JP, Stewart JM, De Ghett VJ. Kritické obdobia v organizácii systémov. Vývojová psychobiológia. 1974;7: 489-513. [PubMed]
- Shughrue PJ, Lane MV, Merchenthaler I. Porovnávacia distribúcia estrogénového receptora-alfa a -beta mRNA v centrálnom nervovom systéme potkana. Journal of Comparative Neurology. 1997;388: 507-25. [PubMed]
- Simons-Morton BG, Haynie DL. Psychosociálne prediktory zvýšenej fázy fajčenia medzi šiestimi zrovnávačmi. American Journal of Health Behavior. 2003;27: 592-602. [PubMed]
- Sisk CL, Zehr JL. Pubertálne hormóny organizujú adolescentný mozog a správanie. Hranice v neuroendokrinológii. 2005;26: 163-74. [PubMed]
- Sowell ER, Thompson PM, Leonard CM, Vitajte SE, Kan E, Toga AW. Dlhodobé mapovanie kortikálnej hrúbky a rastu mozgu u normálnych detí. Journal of Neuroscience. 2004;24: 8223-31. [PubMed]
- Sowell ER, Thompson PM, Tessner KD, Toga AW. Mapovanie pokračujúceho mozgového rastu a zníženia hustoty šedej hmoty v zadnej čelnej kôre: Inverzné vzťahy počas dozadového zrenia mozgu. Journal of Neuroscience. 2001;21: 8819-29. [PubMed]
- Spear LP. Adolescentný mozog a prejav správania súvisiace s vekom. Neuroveda a biobehaviorálne hodnotenie. 2000;24: 417-63.
- Su TP, Pagliaro M, Schmidt PJ, Pickar D, Wolkowitz O, Rubinow DR. Neuropsychiatrické účinky anabolických steroidov u mužských zdravých dobrovoľníkov. JAMA. 1993;269: 2760-4. [PubMed]
- Thiblin I, Finn A, Ross SB, Stenfors C. Zvýšené dopaminergné a 5-hydroxytryptaminergné aktivity v mozgu samcov potkanov po dlhodobej liečbe anabolickými androgénnymi steroidmi. British Journal of Pharmacology. 1999;126: 1301-6. [Článok bez PMC] [PubMed]
- Thomas P, Dressing G, Pang Y, Berg H, Tubbs C, Benninghoff A, Doughty K. Progestin, receptory viazané na estrogén a androgén G-proteín v gonadách rýb. Steroidy. 2006;71: 310-6. [PubMed]
- Tricker R, Casaburi R, Storer TW, Clevenger B, Berman N, Shirazi A, Bhasin S. Účinky suprafyziologických dávok testosterónu na nahnevané správanie u zdravých eugonadálnych mužov - štúdia klinického výskumného centra. Journal of Clinical Endocrinology & Metabolism. 1996;81: 3754-8. [PubMed]
- Triemstra JL, Nagatani S, Wood RI. Chemosenzorické podnety sú nevyhnutné pre uvoľňovanie dopamínu indukovaného párením v MPOA samčích škrečkov. Neuropsychopharmacology. 2005;30: 1436-42. [PubMed]
- Triemstra JL, Sato SM, Wood RI. Testosterón a nucleus accumbens dopamín u mužského syrského škrečka. Psychoneuroendocrinology (v tlači)
- Van Eenoo P, Delbeke FT. Prevalencia dopingu vo Flámsku v porovnaní s prevalenciou dopingu v medzinárodných športoch. Medzinárodný žurnál športovej medicíny. 2003;24: 565-570. [PubMed]
- WADA. Nežiaduce analytické zistenia hlásené akreditovanými laboratóriami. 2006. http://www.wada-ama.org.
- Wesson DW, McGinnis MY. Stohovanie anabolických androgénnych steroidov (AAS) počas puberty u potkanov: neuroendokrinné a behaviorálne hodnotenie. Farmakológia, biochémia a správanie. 2006;83: 410-9.
- Wichstrom L, Pedersen W. Použitie anabolicko-androgénnych steroidov v dospievaní: víťazstvo, dobrý vzhľad alebo zlé? Časopis štúdií o alkohole. 2001;62: 5-13. [PubMed]
- Drevo RI, Johnson LR, Chu L, Schad C, Self DW. Testosterónová výstuž: intravenózne a intracerebroventrikulárne samo-podávanie samcov potkanov a škrečkov. Psychopharmacology. 2004;171: 298-305. [PubMed]
- Drevo RI, Newman SW. Receptory androgénu a estrogénu koexistujú s jednotlivými neurónmi v mozgu škrečka sýrskeho. Neuroendokrinologie. 1995;62: 487-97. [PubMed]
- Wood RI, Swann JM. Neuronálna integrácia chemosenzorických a hormonálnych signálov, ktoré kontrolujú mužské sexuálne správanie. In: Wallen K, Schneider JS, redaktori. Reprodukcia v kontexte. MIT Stlačte; Cambridge: 1999. s. 423 – 444.
- Zahm DS, Heimer L. Dve transpallidálne dráhy pochádzajúce z jadra nucleus accumbens. Journal of Comparative Neurology. 1990;302: 437-46. [PubMed]