Neurosci Biobehav Rev. 2011 január;35(3):939-55. doi: 10.1016/j.neubiorev.2010.10.014. Epub 2. novembra 2010.
- 1Bernard B. Brodie Katedra neurovedy, Univerzita v Cagliari, Cittadella Universitaria, 09042 Monserrato, CA, Taliansko. [chránené e-mailom]
Abstrakt
Oxytocín je silný induktor erekcie penisu pri injekcii do centrálneho nervového systému. U samcov potkanov je najcitlivejšou mozgovou oblasťou pre erektilný účinok oxytocínu paraventrikulárne jadro hypotalamu. Toto jadro a okolité oblasti obsahujú bunkové telieska všetkých oxytocinergných neurónov, ktoré vyčnievajú do extra-hypotalamických oblastí mozgu a miechy. Tento prehľad ukazuje, že oxytocín indukuje erekciu penisu aj pri injekcii v niektorých z týchto oblastí (napr. Ventrálna tegmentálna oblasť, ventrálna subiculum hipokampu, posteromediálne kortikálne jadro amygdaly a thoraco-bedrovej miechy). Mikroinjekčné štúdie kombinované s intra-cerebrálnou mikrodialýzou a dvojitými imunofluorescenčnými štúdiami naznačujú, že oxytocín v týchto oblastiach priamo alebo nepriamo aktivuje mezolimbické dopaminergné neuróny (hlavne prostredníctvom kyseliny glutámovej). Dopamín uvoľňovaný v nucleus accumbens zase aktivuje nervové dráhy, ktoré vedú k aktivácii inertno-hypotalamických dopaminergných neurónov v paraventrikulárnom jadre. Toto aktivuje nielen oxytocinergné neuróny vyčnievajúce do miechy a sprostredkúvajúce erekciu penisu, ale aj tie, ktoré vyčnievajú do vyššie uvedených extra-hypotalamických oblastí, modulujúc priamo alebo nepriamo (prostredníctvom kyseliny glutámovej) aktivitu mezolimbických dopaminergných neurónov riadiacich motiváciu a odmenu. Tieto neurónové cesty spolu môžu tvoriť komplexný hypotetický obvod, ktorý zohráva úlohu nielen vo fajčiarskej fáze sexuálnej aktivity (erektilná funkcia a kopulácia), ale aj v motivačných a odmeňovacích aspektoch očakávanej fázy sexuálneho správania.
1.Introduction
Erekcia penisu je mužská sexuálna reakcia, ktorá hrá kľúčovú úlohu v reprodukcii cicavcov vrátane človeka a ktorú možno pozorovať aj v kontextoch odlišných od tých, ktoré sú striktne spojené s reprodukciou. V závislosti od kontextu, v ktorom k erekcii penisu dochádza, sa na jej regulácii podieľajú rôzne centrálne a periférne nervové a/alebo humorálne mechanizmy (pozri Meisel a Sachs, 1994; Argiolas a Melis, 1995, 2004, 2005; Sachs, 2000, 2007; McKenna, 2000; Giuliano a Rampin, 2000, 2004; Andersson, 2001; Melis a Argiolas, 1995a, 2003; Hull a kol., 2002). Medzi centrálne neurotransmitery a neuropeptidy, ktoré riadia erekciu penisu, patria najznámejšie dopamín, serotonín, excitačné aminokyseliny, oxid dusnatý, adrenokortikotropín, oxytocín a opioidné peptidy . Môžu uľahčiť alebo inhibovať erekciu penisu pôsobením v niekoľkých oblastiach mozgu, t. j. v mediálnej preoptickej oblasti, paraventrikulárnom jadre hypotalamu, ventrálnej tegmentálnej oblasti, hipokampe, amygdale, jadre lôžka stria terminalis, nucleus accumbens, predĺženej mieche a mieche (Tabuľka 1) (pozri Meisel a Sachs, 1994; Witt a Insel, 1994; Stancampiano a kol., 1994; Argiolas a Melis, 1995, 2005; Argiolas, 1999; Bancila a kol., 2002; Giuliano a Rampin, 2000, McKenna, 2000; Andersson, 2001; Hull a kol., 2002; Coolen a kol., 2004).
Oxytocín, neurohypofýzový peptid dobre známy svojou hormonálnou úlohou pri laktácii a pôrode, je prítomný u žien a mužov nielen v neurónoch s bunkovými telieskami lokalizovanými v paraventrikulárnych a superoptických jadrách hypotalamu vyčnievajúcich do neurohypofýzy, ale aj v neurónoch vyčnievajúcich od paraventrikulárneho jadra a okolitých štruktúr až po oblasti extrahypotalamického mozgu (tj septum, ventrálna tegmentálna oblasť, hipokampus, amygdala, medulla oblongata a miecha). Predpokladá sa, že tieto neuróny sa podieľajú na mnohých centrálnych funkciách, ako je pamäť, učenie, afiliativne a socio-sexuálne správanie, vrátane erekcie penisu a kopulačného správania (pozri Buijs, 1978, Sofroniew, 1983, Argiolas a Gessa, 1991, Pedersen a kol. 1992, Carter, 1992, Wagner a Clemens, 1993, Ivell a Russel, 1995, Carter a kol., 1997, Tang a spol., 1998, Veronneau-Longueville a spol., 1999). V skutočnosti oxytocín u myší, potkanov, králikov a opíc uľahčuje erektilnú funkciu a mužské sexuálne správanie (pozri Argiolas a Gessa, 1991, Carter, 1992, Pedersen a kol., 1992, Argiolas a Melis, 1995, 2004, Argiolas, 1999). Toto sa môže vyskytnúť aj u ľudí, pretože plazmatický oxytocín je zvýšený sexuálnymi podnetmi, najmä pri ejakulácii (Carmichael et al., 1987, Murphy a ďalší, 1987) a manipuláciou prsníka a pohlavných orgánov, pohlavný styk (Tindall, 1974).
Uľahčujúci účinok oxytocínu na mužské sexuálne správanie sa najskôr prejavil schopnosťou intravenózneho oxytocínu znížiť latenciu k prvej ejakulácii a spomaliť sexuálne vyčerpanie samcov králikov spárovaných s receptami (Melin a Kihlstrom, 1963). Avšak sexuálne účinky oxytocínu boli definitívne uznané až v osemdesiatych rokoch. Oxytocín podávaný centrálne v nanogramových množstvách bol potom schopný vyvolať erekciu penisu (Argiolas a kol., 1985, 1986) a zlepšiť kopulačné správanie (Arletti a kol., 1985) u samcov potkanov a zvýšiť lordózu samíc potkanov (Arletti a Bertolini, 1985, Caldwell a kol., 1986), zjavne pôsobením na oxytocinergné receptory maternice (pozri Argiolas a Melis, 1995, 2004, Argiolas, 1999, Melis a Argiolas, 2003 a odkazy v nich). Oxytocín zlepšuje sexuálne správanie nielen u sexuálne silných samcov potkanov (Arletti et al., 1985), ale aj u starších samcov potkanov (Arletti et al., 1990) a dominantných, ale nie podriadených, samíc veveričiek (Winslow a Insel , 1991).
Proerektilný účinok oxytocínu je závislý od testosterónu, pretože sa ruší hypofyzektómiou a kastráciou a obnovuje sa suplementáciou testosterónom alebo jeho metabolitmi, estradiolom a 5-dihydrotestosterónom, ktoré sa podávajú spoločne (Melis a kol., 1994a). Najcitlivejšou oblasťou mozgu na vyvolanie erekcie penisu oxytocínom je paraventrikulárne jadro hypotalamu (Melis a kol., 1986), z ktorého pochádzajú všetky extrahypotalamické oxytocinergné projekcie (pozri vyššie). V tomto prípade sa zistilo, že oxytocín je schopný vyvolať erekciu penisu (a zívanie) pri injekčnom podaní v dávkach už od 3 pmol (pozri časť 2.1 nižšie). Oxytocín vyvolal erekciu penisu aj pri bilaterálnej injekcii do poľa CA1 hipokampu, ale nie do dorzálneho subikula (pozri časť 2.3 nižšie), laterálneho septa, nucleus caudatus, mediálnej preoptickej oblasti, ventromediálneho nucleus hypotalamu a supraoptického nucleus (Melis a kol., 1986). Pokiaľ ide o mechanizmus, akým oxytocín pôsobí v paraventrikulárnom nucleus a vyvoláva túto sexuálnu odpoveď, početné štúdie naznačujú, že oxytocín aktivuje svoje vlastné neuróny. V súlade s touto hypotézou sexuálna interakcia zvyšuje FOS, génový produkt bezprostredného skorého génu c-fos v paraventrikulárnych oxytocinergných neurónoch premietajúcich sa do miechy, ktoré sa podieľajú na kontrole erekcie penisu (pozri Witt a Insel, 1994 a odkazy v nich uvedené), a sexuálna impotencia (napr. neschopnosť dospelého samca potkana kopulovať s receptívnou samicou po ovariektómii, ktorá je primárne stimulovaná estrogénom a progesterónom) bola u samcov potkanov spojená s nízkymi hladinami mRNA oxytocínu v paraventrikulárnom jadre hypotalamu (Arletti a kol., 1997).
Či oxytocín ovplyvňuje anticipačnú fázu alebo konzumačnú fázu sexuálneho správania, v súčasnosti nie je jasné . Keďže oxytocín indukuje erekciu penisu a hlavným účinkom oxytocínu na kopulačné správanie je skrátenie postejakulačného intervalu u samcov potkanov (Arletti a kol., 1985), je rozumné predpokladať, že peptid zlepšuje sexuálny výkon. Keďže však oxytocín tiež zvyšuje socio-sexuálnu interakciu (pozri Pedersen a kol., 1992; Carter a kol., 1997; Ivell a Russel, 1995) a antagonisty oxytocínových receptorov zabraňujú bezkontaktným erekciám (Melis a kol., 1999a), ktoré sa považujú za index sexuálneho vzrušenia (pozri Sachs, 1997, 2000, 2007; Melis a kol., 1998, 1999b a odkazy v nich uvedené), nemožno vylúčiť možnú úlohu oxytocínu v sexuálnom vzrušení a sexuálnej motivácii.
Táto recenzia sumarizuje publikované a nepublikované výsledky nedávnych štúdií, ktoré ukazujú, že oxytocín indukuje erekciu penisu nielen po injekcii do paraventrikulárneho jadra hypotalamu, ale aj v iných extrahypotalamických oblastiach mozgu, ako je ventrálna tegmentálna oblasť (Melis a kol., 2007, 2009a; Succu a kol., 2008), ventrálne subikulum hipokampu a zadné jadro amygdaly (Melis a kol., 2009b, 2010), ktoré sú dôležitými zložkami limbického systému a predpokladá sa, že hrajú kľúčovú úlohu v procesoch motivácie a odmeňovania. Tieto štúdie ukazujú, že oxytocín sa zúčastňuje neurálnych okruhov, ktoré zahŕňajú iné neurotransmitery, ako je dopamín a kyselina glutámová, a iné oblasti mozgu okrem paraventrikulárneho jadra, napr. ventrálna tegmentálna oblasť, nucleus accumbens, hipokampus a oblasti, ktoré ešte neboli identifikované. Tieto okruhy pravdepodobne sprostredkovávajú interakciu medzi mezolimbickým a incerto-hypotalamickým dopaminergným systémom a hrajú úlohu nielen v konzumačnej fáze mužského sexuálneho správania (napr. erekcia penisu a kopulácia), ale aj v sexuálnej motivácii a sexuálnom vzrušení, čím poskytujú neurálny substrát na vysvetlenie motivačných a odmeňujúcich vlastností sexuálnej aktivity.
2. Oxytocín ovplyvňuje erekciu penisu tým, že pôsobí v rôznych oblastiach mozgu
2.1. Paraventrikulárne jadro hypotalamu
Ako už bolo spomenuté vyššie, paraventrikulárne jadro hypotalamu bolo čoskoro identifikované ako oblasť mozgu, ktorá je najcitlivejšia pre pro-erektilný účinok oxytocínu. Keď sa jednostranne injikovalo v tomto jadre, bol oxytocín aktívny v dávkach tak nízkych ako 3 ng (3 pmol) (Melis a kol., 1986). Štúdie vzťahov medzi štruktúrou a aktivitou odhalili, že erekcia penicilu indukovaná oxytocínom bola sprostredkovaná receptormi oxytocínu uterinety, spojenými s influxom Ca2 + do bunkových teliesok oxytocinergných neurónov vyčnievajúcich do extra-hypotalamických oblastí mozgu ak aktivácii syntázy oxidu dusnatého. Oxid dusnatý pôsobením ako intracelulárneho mediátora s ešte neznámym mechanizmom (nezahŕňajúcim guanylátcyklázu) vedie k aktivácii oxytocinergných neurónov vyčnievajúcich do oblasti miechy a extra-hypotalamických oblastí mozgu, čo spôsobuje erekciu penisu (pozri obrázok 1) (pozri nižšie a Argiolas a Melis, 1995, 2004, 2005 a odkazy v nich). Schopnosť oxytocínu aktivovať vlastné neuróny
Obrázok 1. (MISSING) Schematické znázornenie oxytocinergných neurónov, ktoré vznikajú v paraventrikulárnom jadre hypotalamu a prechádzajú do extra-hypotalamických oblastí mozgu, ako je miecha, VTA, hipokampus, amygdala atď. Aktivácia týchto neurónov dopamín, excitačné aminokyseliny, samotný oxytocín, peptidy analógov hexarelínu a peptidov odvodených z VGF vedie k erekcii penisu, ktorá môže byť redukovaná a / alebo zrušená stimuláciou receptorov GABAergic, opioidu a kanabinoidu CB1. Aktivácia oxytocinergných neurónov je sekundárna aktivácia syntázy oxidu dusnatého prítomného v týchto neurónoch. V skutočnosti endogénny oxid dusnatý tvorený stimuláciou dopamínových, excitačných aminokyselín alebo oxytocínových receptorov alebo exogénneho oxidu dusnatého, ktorý pochádza z donorov oxidu dusnatého, ktoré sa podávajú priamo do paraventrikulárneho jadra, aktivuje oxytocinergné neuróny pomocou ešte neidentifikovaného mechanizmu, zjavne nesúvisiaceho s stimulácia guanylátcyklázy. To spôsobuje uvoľnenie oxytocínu v mieche a extra-hypotalamických oblastiach mozgu. Niektoré podrobnosti o mechanizmoch, ktorými oxytocín indukuje erekciu penisu, keď je uvoľnený v týchto oblastiach, napr. VTA, ventrálna subiculum a amygdala sú opísané v príslušných častiach oblasti mozgu. Účinok oxytocínu pôsobí na vlastné receptory a zvyšuje produkciu NO, čo vedie k erekcii penisu, ktorá sa nachádza v PVN. Avšak v rozpore s PVN v kaudálnom VTA NO aktivuje guanylát cyklázu. To spôsobuje zvýšenie koncentrácie cGMP, čo vedie k aktivácii mezolimbických dopaminergných neurónov a k erekcii penisu. Vo VS NIE sa aktivujú glutamatergické neuróny vyčnievajúce do extra-hipokampálnych oblastí, vrátane VTA. Kyselina glutámová vo VTA aktivuje mesolimbické dopaminergné neuróny, ktoré sa zistili pri oxytocíne. Mechanizmy podobné tým, ktoré sú opísané vyššie, budú pravdepodobne fungovať aj vtedy, keď dôjde k erekcii penisu vo fyziologickom kontexte, a to vtedy, ak sa samce potkanov umiestnia v prítomnosti neprístupnej samice (napr. Bezkontaktnej erekcie) alebo počas kopulácie.
Existenciu oxytocínových receptorov v paraventrikulárnom jadre podporili štúdie, ktoré ukazujú, že: (1) v tomto hypotalamickom jadre sú prítomné oxytocínové receptory (Freund-Mercier a kol., 1987; Freund-Mercier a Stoeckel, 1995); (2) oxytocín uľahčuje svoje vlastné uvoľňovanie in vitro a in vivo (Freund-Mercier a Richard, 1981, 1984; Moos a kol., 1984); a (3) oxytocín excituje svoje vlastné neuróny pôsobením v paraventrikulárnom jadre (Yamashita a kol., 1987). Okrem toho boli v paraventrikulárnom a supraoptickom jadre hypotalamu identifikované aj oxytocinergné synapsie, ktoré narážajú na bunkové telá magnocelulárnych oxytocinergných neurónov (Theodosis, 1985). Nakoniec, deštrukcia centrálnych oxytocinergných neurónov elektrolytickými alebo chemickými excitotoxickými léziami paraventrikulárneho jadra, ktorá úplne vyčerpáva obsah oxytocínu v centrálnom nervovom systéme a mieche, ruší nielen proerektilný účinok oxytocínu, ale tiež zhoršuje erekciu penisu vyvolanú liekmi a bezkontaktné erekcie (pozri nižšie a Argiolas a kol., 1987a,b; Liu a kol., 1997 a odkazy v nich uvedené). Výsledky podobné tým, ktoré sa zistili pri léziách paraventrikulárneho jadra, sa dosahujú pri použití silných a selektívnych antagonistov oxytocínových receptorov. Tieto zlúčeniny injektované do paraventrikulárneho jadra v nanogramových množstvách skutočne úplne zabránili oxytocínom indukovanej erekcii penisu, zatiaľ čo pri podaní do laterálnych komôr zabránili nielen erekcii penisu indukovanej samotným oxytocínom, ale aj erekcii penisu indukovanej liekmi (pozri časť 3 nižšie a Argiolas a Melis, 1995, 2004, 2005 a tam uvedené odkazy) a bezkontaktným erekciám (Melis a kol., 1999a) a boli navyše mimoriadne účinné pri zhoršovaní kopulačného správania sexuálne potentných samcov potkanov (Argiolas a kol., 1988). Okrem toho sexuálna interakcia zvyšuje FOS, génový produkt bezprostredného skorého génu c-fos v paraventrikulárnych oxytocinergných neurónoch premietajúcich sa do miechy zapojených do kontroly erekcie penisu (pozri Witt a Insel, 1994 a tam uvedené odkazy). Nakoniec, sexuálna impotencia (napr. neschopnosť dospelého samca potkana kopulovať s receptívnou samicou aktivovanou estrogénom a progesterónom) bola u samcov potkanov spojená aj s nízkymi hladinami mRNA oxytocínu a syntázy oxidu dusnatého v paraventrikulárnom jadre hypotalamu (Benelli a kol., 1995; Arletti a kol., 1997) (rozsiahly prehľad týchto štúdií pozri v Argiolas, 1999; Argiolas a Melis, 2004, 2005).
2.2. Ventrálna tegmentová oblasť
Ventrálna tegmentálna oblasť bola objavená len nedávno ako miesto v mozgu, v ktorom oxytocín indukuje erekciu penisu . Táto oblasť obsahuje oxytocínergné nervové zakončenia pochádzajúce z paraventrikulárneho jadra a oxytocínové receptory (Freund-Mercier a kol., 1987; Vaccari a kol., 1998). Presnejšie povedané, zistilo sa, že oxytocín je schopný indukovať erekciu penisu pri jednostrannej injekcii do kaudálnej oblasti, ale nie do rostrálnej ventrálnej tegmentálnej oblasti v závislosti od dávky (Melis a kol., 2007). Účinné dávky boli vyššie ako dávky potrebné pri injekcii do paraventrikulárneho jadra a podobné dávkam indukujúcim erekciu penisu pri injekcii do ventrálneho subikula hipokampu alebo do posteromediálneho kortikálneho jadra amygdaly (pozri nižšie). Zdá sa, že proerektilný účinok je sprostredkovaný aktiváciou mezolimbických dopaminergných neurónov premietajúcich sa do schránky nucleus accumbens, čo následne aktivuje doteraz neznáme nervové dráhy premietajúce sa do incerto-hypotalamických dopaminergných neurónov, ktoré pôsobia na paraventrikulárne oxytocinergné neuróny sprostredkujúce erekciu penisu (Melis a kol., 2007, 2009a).
Pokiaľ ide o mechanizmus, ktorým oxytocín aktivuje dopaminergnú neurotransmisiu vo ventrálnej tegmentálnej oblasti, dostupné údaje naznačujú, že oxytocín stimuluje oxytocinergné receptory nachádzajúce sa v bunkových telách mezolimbických dopaminergných neurónov. To zvyšuje prítok Ca2+ do bunkových tiel dopaminergných neurónov, čím aktivuje syntázu oxidu dusnatého (Succu a kol., 2008). Na rozdiel od paraventrikulárneho jadra (pozri časť 3 nižšie) oxid dusnatý zase aktivuje guanylátcyklázu, čím zvyšuje koncentráciu cyklického GMP. V súlade s týmto mechanizmom, buď d(CH2)5Tyr(Me)2-Orn8-vazotocín, silný antagonista oxytocínu, alebo S-metyl-tio-l-citrulín, silný inhibítor neuronálnej syntázy oxidu dusnatého, injikované do kaudálnej ventrálnej tegmentálnej oblasti pred oxytocínom, zrušili erekciu penisu a zvýšenie extracelulárnej koncentrácie dopamínu v škrupine nucleus accumbens indukované oxytocínom. Okrem toho, 8-bróm-cyklický GMP, aktívny analóg cyklického GMP rezistentný na fosfodiesterázu, indukuje erekciu penisu po injekcii do kaudálnej ventrálnej tegmentálnej oblasti a zvyšuje extracelulárnu koncentráciu dopamínu v škrupine nucleus accumbens, ako sa zistilo pri oxytocíne injikovanom do kaudálnej ventrálnej tegmentálnej oblasti (Succu a kol., 2008; Melis a kol., 2009a) (pozri tiež obr. 2).
V súlade s týmto mechanizmom, haloperidol, silný antagonista dopamínového D2 receptora, injekčne podaný do škrupiny nucleus accumbens, znižuje erekciu penisu vyvolanú oxytocínom injekčne podaným do ventrálnej tegmentálnej oblasti (Melis a kol., 2007). Vyššie uvedený mechanizmus podporujú aj štúdie dvojitej imunofluorescencie, ktoré ukazujú, že oxytocínové vlákna narážajú na bunkové telá dopaminergných neurónov v kaudálnej ventrálnej tegmentálnej oblasti, ktoré boli predtým označené retrográdnym tracerom Fluorogoldom injekčne podaným do škrupiny nucleus accumbens (Melis a kol., 2007; Succu a kol., 2008). Aktivácia týchto dopaminergných neurónov a dopamínových receptorov v nucleus accumbens vedie následne k aktivácii nervových dráh, ktoré ešte neboli identifikované a ktoré stimulujú incerto-hypotalamické dopaminergné neuróny k uvoľňovaniu dopamínu v paraventrikulárnom jadre, čím aktivujú oxytocínergné neuróny premietajúce sa do miechy a sprostredkujúce erekciu penisu (pozri vyššie a Melis a kol., 2007; Succu a kol., 2007, 2008). Oxytocín injektovaný do kaudálnej ventrálnej tegmentálnej oblasti v dávke, ktorá vyvolala erekciu penisu, skutočne zvýšil extracelulárnu koncentráciu dopamínu v dialyzáte získanom nielen z nucleus accumbens, ale aj z paraventrikulárneho jadra (Succu a kol., 2007).
2.3. Hipokampus
Pole CA1 hipokampu bolo ďalšou oblasťou mozgu bohatou na oxytocinergné vlákna a receptory identifikované v skorších štúdiách, v ktorých injekcia oxytocínu indukovala erekciu penisu (pozri Bujis, 1978; Sofroniew, 1983). Na rozdiel od paraventrikulárneho jadra sa však tu zistilo, že oxytocín je schopný indukovať erekciu penisu iba pri bilaterálnej injekcii a vo vyšších dávkach, ako sú tie, ktoré boli aktívne v paraventrikulárnom jadre (Melis a kol., 1986; Chen a kol., 1992). Injekcie oxytocínu do subikula sa v týchto skorších štúdiách ukázali ako neaktívne. Nedávne a dôkladnejšie štúdie mikroinjekcií však viedli k identifikácii oblasti ventrálneho subikula, v ktorej bola injekcia oxytocínu schopná indukovať erekciu penisu spôsobom závislým od dávky (Melis a kol., 2009b). Proerektilný účinok oxytocínu injekčne podaného do tejto oblasti mozgu sa pozoroval pri dávkach podobných tým, ktoré boli aktívne vo ventrálnej tegmentálnej oblasti po jednostrannej injekcii (Melis a kol., 2007), ako sa nachádza v paraventrikulárnom jadre. Zdá sa, že oxytocín injekčne podaný do ventrálneho subikula indukuje erekciu penisu aktiváciou oxytocinergných receptorov v neurónoch obsahujúcich syntázu oxidu dusnatého, čo spôsobuje zvýšenie produkcie oxidu dusnatého. Oxid dusnatý zase pôsobením ako medzibunkový posol aktivuje neurotransmisiu kyseliny glutámovej, čo vedie k erekcii penisu, pravdepodobne prostredníctvom nervových (glutamatergných) eferentných projekcií z ventrálneho subikula do extrahipokampálnych oblastí mozgu, ktoré modulujú aktivitu mezolimbických dopaminergných neurónov (napr. ventrálna tegmentálna oblasť, prefrontálny kortex, paraventrikulárne jadro) (pozri nižšie a Melis, 2007, 2009b; Succu a kol., 2008).
Tento mechanizmus účinku je podporovaný intra-cerebrálnymi mikrodialyzačnými experimentami, ktoré ukazujú, že oxytocín vstreknutý do ventrálnej čiastočky v dávkach, ktoré indukujú erekciu penisu, zvyšuje produkciu oxidu dusnatého a koncentráciu extracelulárnej kyseliny glutámovej v dialyzáte z ventrálnej subskultúry (Melis et al. , 2010) a extracelulárneho dopamínu v nucleus accumbens (Melis a kol., 2007). Tieto reakcie boli antagonizované nielen antagonistom oxytocínového receptora d (CH2) 5Tyr (Me) 2-Orn8-vazotocínom, ale tiež inhibítorom neuronálnej oxidázy dusičnato-syntázy S-metyltio-lcitrulínom a hemoglobínom zachytávajúcim oxid dusnatý do ventrálnej čiastočky niekoľko minút pred oxytocínom (Melis et al., 2010).
Navyše, v súlade s týmto mechanizmom účinku, aktivácia glutamátergickej neurotransmisie pomocou NMDA injikovaného do ventrálneho subikula indukuje erekciu penisu (Melis a kol., 2010). Fenotyp eferentných projekcií z ventrálneho subikula, ktoré spôsobujú aktiváciu mezolimbických dopaminergných neurónov a zvýšenie extracelulárneho dopamínu v nucleus accumbens, nie je v súčasnosti známy. Keďže však erekcia penisu vyvolaná oxytocínom injekčne podaným do ventrálneho subikula nastáva súbežne so zvýšením extracelulárnej kyseliny glutámovej v dialyzáte z ventrálnej tegmentálnej oblasti, ale nie z nucleus accumbens, a je antagonizovaná (+)MK-801, silným nekompetitívnym antagonistom excitačných aminokyselinových receptorov podtypu NMDA (Woodruff a kol., 1987), injekčne podaným do ventrálnej tegmentálnej oblasti, ale nie do nucleus accumbens (pozri obr. 2 a Melis a kol., 2009b), je pravdepodobné, že tieto projekcie vedú k aktivácii glutamatergickej neurotransmisie vo ventrálnej tegmentálnej oblasti, čo následne aktivuje mezolimbické dopaminergné neuróny projekčné do nucleus accumbens. V súčasnosti nie je známe, či sa zvýšená koncentrácia kyseliny glutámovej, ktorá sa nachádza vo ventrálnej tegmentálnej oblasti po injekcii oxytocínu do ventrálneho subikula, uvoľňuje z neurónov pochádzajúcich zo subikula alebo z iných oblastí mozgu (napr. prefrontálny kortex). Napriek tomu to spôsobuje aktiváciu mezolimbických dopaminergných neurónov a zvýšené uvoľňovanie dopamínu v nucleus accumbens . Tu aktivácia dopamínových receptorov vedie k aktivácii incerto-hypotalamických dopaminergných neurónov, čím sa uvoľňuje dopamín v paraventrikulárnom jadre, čím sa aktivujú oxytocinergné neuróny premietajúce sa do miechy a sprostredkujúce erekciu penisu (pozri vyššie a Melis a kol., 2007, 2009a; Succu a kol., 2008).
2.4. Amygdala
Amygdala je ďalšia oblasť mozgu bohatá na oxytocínové vlákna a receptory (pozri Freund-Mercier a kol., 1987, Vaccari a kol., 1998, Uhl-Bronner a kol., 2005). Oxytocín je tu myšlienka byť zapojený v rôznych funkciách, od anxiolysis, sociálne pamäť a poznávanie, spoločensky vystužené učenie, emocionálne empatia, emočné spracovanie tváre a strachu ľudí k erektilnej funkcie a sexuálne správanie (pozri Kondo et al, 1998 ;. Dominguez et al., 2001, Ebner a kol., 2005, Huber a kol., 2005, Domes a kol., 2007, Petrovic a kol., 2008, Lee et al., 2009, Donaldson and Young, 2009, Hurlemann et al. , 2010). Avšak schopnosť oxytocínu indukovať erekciu penisu u samcov potkanov pri indukcii v posteromediálnom kortikálnom jadre amygády bola objavená až nedávno (Melis et al., 2009b). Táto odpoveď sa vyskytla súčasne so zvýšenou extracelulárnou koncentráciou dopamínu v dialyzáte získanom z jadra nucleus accumbens, ktorý bol nájdený po injekcii oxytocínu do ventrálnej čiastočky (Melis et al., 2009b). Mechanizmus, ktorým oxytocín injikovaný do posteromediálneho kortikálneho jadra amygdaly indukuje erekciu penisu, nie je v súčasnosti známy. Dostupné údaje ukazujú, že ako erekcia penisu, tak aj zvýšenie extracelulárnej koncentrácie dopamínu v dialyzáte získanom z nucleus accumbens sú sprostredkované aktiváciou oxytocinergných receptorov, pretože obe reakcie boli zrušené antagonistom oxytocínového receptora d (CH2) 5Tyr Me) 2-Orn8-vazotocín injikovaný v jadre amygdaly niekoľko minút pred oxytocínom (Melis et al., 2009b).
Bez ohľadu na mechanizmus, ktorým sa oxytocín aktivuje v posteromediálnom kortikálnom jadre amygdaly, sexuálna odpoveď vyvolaná peptidom je zrušená blokádou všetkých dopaminergných receptorov cis-flupenthixolom injekčne podaným do škrupiny nucleus accumbens a blokádou NMDA receptorov (+)MK-801 injekčne podaným do ventrálnej tegmentálnej oblasti, ale nie do nucleus accumbens, ako sa zistilo pri erekcii penisu vyvolanej oxytocínom injekčne podaným do ventrálneho subikula (Melis a kol., 2009b). To naznačuje, že oxytocín injekčne podaný do posteromediálneho jadra amygdaly aktivuje neurotransmisiu kyseliny glutámovej vo ventrálnej tegmentálnej oblasti. To následne spôsobuje aktiváciu mezolimbických dopaminergných neurónov, čo vedie k erekcii penisu. Vzhľadom na štúdie, ktoré ukazujú nervové dráhy prepájajúce toto jadro amygdaly s ventrálnou subikulum (Canteras a kol., 1995; French a Totterdell, 2003), tieto zistenia naznačujú možnosť existencie interakcie medzi týmito dvoma oblasťami mozgu, hoci boli opísané priame dráhy z amygdaly buď do nucleus accumbens, alebo do ventrálnej tegmentálnej oblasti (Kelley a Domesick, 1982; Witter, 2006).
2.5. Miecha
Močová kosť je ďalšou oblasťou centrálneho nervového systému, ktorá obsahuje oxytocinergné vlákna a receptory (Freund-Mercier a kol., 1987, Uhl-Bronner a spol., 2005), v ktorých oxytocín indukuje erekciu penisu (Tang et al., 1998 Veronneau-Longueville a kol., 1999, Giuliano a Rampin, 2000, Giuliano a kol., 2001). Ako bolo spomenuté vyššie, tieto oxytocinergné vlákna pochádzajú z paraventrikulárneho jadra hypotalamu a prispievajú k zostupným cestám, ktoré kontrolujú spinálne autonómne neuróny sprostredkujúce erekciu penisu. V skutočnosti tieto vlákna vytvárajú synaptické kontakty v kolónach predsieňových lýtkových a parasympatických buniek dorsálneho rohu v torakovo-bedrovom a lumbosakrálnom trakte s spinálnymi neurónmi, ktoré inervujú penisné kavernózne korpusy (Marson a McKenna, 1996, Giuliano a Rampin, 2000, Giuliano a kol. , 2001). Tieto synaptické kontakty boli preukázané označením miechových neurónov pochádzajúcich z penisu a dosiahnutím miechy so špecifickými retrográdnymi markermi vstreknutými do kavernóznych korpusov v kombinácii so štúdiami dvojitej imunofluorescenčnej a konfokálnej laserovej mikroskopie (Tang et al., 1998, Veronneau-Longueville a spol., 1999). V súlade s týmito štúdiami v prípade anestetizovaných samcov potkanov intratekálna injekcia kumulatívnych dávok oxytocínu na lumbo-sacral, ale nie na úrovni torakovo-bedrovej oblasti spôsobila zvýšenie intracavernózneho tlaku v závislosti od dávky. Tieto účinky boli zrušené blokádou oxytocinergického receptora d (CH2) 5Tyr (Me) 2-Orn8-vazotocínom a sekciou panvových nervov (Giuliano a Rampin, 2000, Giuliano a kol., 2001). Tieto výsledky ukazujú, že oxytocín, pôsobiaci na lumbo-sacral miechu, zvyšuje intracavernózny tlak a naznačuje, že oxytocín, uvoľnený počas fyziologickej aktivácie paraventrikulárneho jadra je silným aktivátorom spinálnych pro-erektilných neurónov vyčnievajúcich do kavernóznych korpusov. Zaujímavé je, že tieto pro-erektilné spinálne neuróny, na ktorých pôsobí oxytocín na účinok pro-erekcie, tiež dostávajú synaptické kontakty zo sérotoninergných neurónov pochádzajúcich z jadra paragiantocelulárneho retikulárnej tvorby medulla oblongata (Marson a McKenna, 1992, Tang et al. ., 1998). Zničenie týchto serotonínergných neurónov u mužských potkanov uľahčuje ejakuláciu a penilné reflexie (Marson a McKenna, 1992, Yells a kol., 1992). Keďže lieky, ktoré stimulujú receptory 5HT2C, uľahčujú erekciu penisu, keď sú podávané intracerebroventrikulárne, ale nie do paraventrikulárneho jadra, a lieky, ktoré blokujú receptory 5HT2C, tiež znižujú dopamínový agonist a erekciu penicilínu indukovanú oxytocínom, zatiaľ čo antagonisti dopamínu neznižujú erekciu penisu indukovanú agonistom 5HT2C pozri Stancampiano et al., 1994 a odkazy v ňom), bolo tiež navrhnuté, že oxytocín uľahčuje pôsobenie proreretilných 5HT2C receptorov na úrovni lumboskarálnej miechy (Stancampiano et al., 1994). Alternatívne môže oxytocín ovplyvňovať aktivitu spinálnych klesajúcich serotonínergných neurónov pôsobením priamo v nucleus paragigantocellularis, kde tieto neuróny pochádzajú (pozri Stancampiano et al., 1994). V súlade s touto možnosťou bola opísaná oxytocinergná dráha vychádzajúca z paraventrikulárneho jadra a dosahujúca nucleus paragigantocellularis retikulárnej formácie v predĺženej mieche (Bancila a kol., 2002) a aktivácia 5HT2C receptorov nachádzajúcich sa v mieche pod dopamínovými a oxytocínovými receptormi sa považuje za bežný mechanizmus proerektilného účinku týchto zlúčenín a dokonca aj peptidov ACTH-MSH (Kimura a kol., 2008).
3. Interakcie medzi oxytocínom, dopamínom a kyselinou glutámovou v centrálnom nervovom systéme a erekciou penisu
Ako bolo uvedené v časti 1, všetky oxytocinergné neuróny prítomné v centrálnom nervovom systéme pochádzajú z paraventrikulárneho jadra a okolitých štruktúr. Aktivita týchto neurónov je riadená rôznymi neurotransmitermi a/alebo neuropeptidmi. Medzi najviac študované na paraventrikulárnej úrovni patrí dopamín, kyselina glutámová, kyselina gama-aminomaslová (GABA), oxid dusnatý, endokanabinoidy, opioidné peptidy, peptidy uvoľňujúce rastový hormón, peptidy súvisiace s VGF a samotný oxytocín. Dopamín, kyselina glutámová, peptidy uvoľňujúce rastový hormón, peptidy odvodené od VGF a oxytocín sú stimulačné, napr. tieto zlúčeniny a ich agonisty uľahčujú erekciu penisu po injekcii do paraventrikulárneho jadra, zatiaľ čo GABA, opioidné peptidy a endokanabinoidy sú inhibičné, napr. tieto zlúčeniny alebo ich agonisty inhibujú erekciu penisu (pozri Meisel a Sachs, 1994; Witt a Insel, 1994; Argiolas a Melis, 1995, 2004, 2005; Giuliano a Rampin, 2000, 2004; McKenna, 2000; Andersson, 2001; Hull a kol., 2002).
Niekoľko riadkov experimentálnych dôkazov naznačuje, že tieto oxytocinergné neuróny a vyššie uvedené neurotransmitery a neuropeptidy sa podieľajú na kontrole erektilnej funkcie a sexuálneho správania v rôznych fyziologických súvislostiach. Navyše oxytocín uvoľnený v extra-hypotalamických oblastiach mozgu, ako je ventrálna tegmentálna oblasť, hipokampus a jeho oblasti, amygdala a miecha môžu ovplyvňovať aktivitu tých neurónov, na ktoré pôsobia oxytocinergné synapsie. V súčasnosti sú jedinými neurónmi dôležitými pre erekciu penisu, na ktorých narážajú oxytocinergné synapsie, s istotou identifikované bunkové telieska mezolimbických dopamínergných neurónov kaudálnej ventrálnej tegmentálnej oblasti vyčnievajúcich do plášťa jadrového úponku (Melis et al., 2007 (Succu et al., 2008) a proreretilné spinálne neuróny vyčnievajúce z lumbo-sacrálneho traktu do kavernóznych korpusov (viď Giuliano a Rampin, 2000, Giuliano a kol., 2001) (pozri tiež sekcie 2.2 a 2.5) , V skutočnosti, aj keď oxytocinergic synapsie a receptory boli tiež identifikované vo ventrálnej subiculum, amygdala a miechy, oblasti, ktoré sú dôležité pre erekciu penisu (pozri vyššie), v týchto oblastiach druh neurotransmiterov / s prítomné v neurónoch na ktoré ovplyvňujú oxytocinergné nervové zakončenia, sú stále neznáme.
Táto časť prehľadu stručne zhŕňa nedávnu literatúru o mechanizmoch, ktoré sú základom proerektilného účinku oxytocínu injektovaného do kaudálnej ventrálnej tegmentálnej oblasti, ventrálneho subikula hipokampu a do miechy. Osobitná pozornosť sa venuje interakcii peptidu s dopamínom a kyselinou glutámovou v týchto oblastiach a úlohe, ktorú môže táto interakcia zohrávať v centrálnej kontrole erektilnej funkcie. Najprv sa uvádza stručné zhrnutie účinkov dopamínu a kyseliny glutámovej na oxytocinergné neuróny v paraventrikulárnom jadre, ktoré tiež zohrávajú kľúčovú úlohu v erektilnej funkcii, aby sa čitateľ oboznámil s počiatočným stavom výskumu v tejto oblasti, keďže tieto štúdie už boli rozsiahlo prehodnotené (pozri Argiolas a Melis, 1995, 2004, 2005; Melis a Argiolas, 2003). Aj v tomto prípade sa osobitná pozornosť venuje najnovším výsledkom, ktoré naznačujú dôležitú úlohu prepojenia dopamín-oxytocín a prepojenia kyselina glutámová-oxytocín nielen v sexuálnom výkone (erekcia penisu a kopulácia), ale aj v sexuálnom vzrušení a sexuálnej motivácii.
3.1. Interakcia medzi dopamínom a oxytocínom v paraventrikulárnom jadre
Schopnosť agonistov dopamínu indukovať erekciu penisu aktiváciou centrálnych oxytocinergných neurónov bola naznačená bezprostredne po objave, že apomorfín indukuje erekciu penisu po injekčnom podaní do paraventrikulárneho jadra (Melis a kol., 1987), keď sa zistilo, že antagonista oxytocínového receptora d(CH2)5Tyr(Me)2-Orn8-vazotocín injikovaný intracerebroventrikulárne (icv) je schopný takmer úplne znížiť erekciu penisu indukovanú nielen oxytocínom podaným icv, ale aj apomorfínom podaným subkutánne (Argiolas a kol., 1987b). Tieto výsledky nasledovali výsledky iných štúdií, ktoré preukázali podobné výsledky, keď bol d(CH2)5Tyr(Me)2-Orn8-vazotocín podaný icv a apomorfín bol podaný priamo do paraventrikulárneho jadra (Melis a kol., 1989b), čo viedlo k domnienke, že agonisty dopamínu indukujú erekciu penisu aktiváciou paraventrikulárnych oxytocinergných neurónov premietajúcich sa do extrahypotalamických oblastí mozgu a najmä do miechy (pozri Argiolas a Melis, 1995, 2004, 2005). V súlade s touto hypotézou sa nedávno zistilo, že u anestetizovaných potkanov je blokáda lumbosakrálnych oxytocínergných receptorov nepeptidovým antagonistom oxytocínových receptorov schopná zrušiť apomorfínom indukované zvýšenie intrakavernózneho tlaku vyvolané dopamínovým agonistom apomorfínom, čo poskytuje dôkaz o paraventrikulo-spinálnej oxytocínergnej dráhe zapojenej do erekcie penisu (Baskerville a kol., 2009).
Štúdie zamerané na identifikáciu dopamínového receptora zodpovedného za indukciu erekcie penisu odhalili, že aj v paraventrikulárnom jadre agonisty dopamínových receptorov indukujú erekciu penisu pôsobením na dopamínové receptory rodiny D2 , ako sa zistilo pri systémovo podávaných agonistoch dopamínových receptorov (pozri Melis a kol., 1987; Eaton a kol., 1991; Melis a Argiolas, 1995a). Preto sa zistilo, že apomorfín, silný zmiešaný agonista D1/D2 receptorov, a chinpirol, silný selektívny agonista D2 receptorov, ale nie SKF 38393, selektívny agonista D1 receptorov, injekčne podané do tohto hypotalamického jadra, dokázali indukovať erekciu penisu spôsobom závislým od dávky a sexuálna odpoveď vyvolaná týmito agonistami D2 receptorov bola zrušená antagonistami D2 receptorov, ako je haloperidol a l-sulpirid, ale nie SCH 23390, selektívnym antagonistom D1 receptorov (Melis a kol., 1987). Schopnosť apomorfínu vyvolať erekciu penisu po injekčnom podaní do paraventrikulárneho jadra bola tiež potvrdená telemetrickými štúdiami, ktoré ukazujú, že agonista dopamínu podaný do paraventrikulárneho jadra je schopný zvýšiť intrakavernózny tlak u bdelých samcov potkanov bez zmeny systémového krvného tlaku (Chen a kol., 1999; Giuliano a Allard, 2001), ako sa zistilo po systémovej injekcii (Bernabè a kol., 1999). Tieto štúdie tiež potvrdili hlavnú úlohu receptorov D2, pretože agonisty receptorov D1 zvyčajne nedokázali zvýšiť intrakavernózny tlak po injekčnom podaní do paraventrikulárneho jadra (Chen a kol., 1999).
Vtedy bolo k dispozícii niekoľko experimentálnych dôkazov, ktoré naznačovali, že paraventrikulárne D2 receptory, ktorých stimulácia indukuje erekciu penisu, sa nachádzajú na bunkových telách oxytocinergných neurónov. Po prvé, paraventrikulárne jadro obsahuje dopaminergné nervové zakončenia, ktoré patria do tzv. incertohypotalamických dopaminergných neurónov. Bunkové telá týchto neurónov sa nachádzajú v skupine A13 a A14 podľa Dahlstroma a Fuxeho (1964), extenzívne sa arborizujú a inervujú niekoľko hypotalamických štruktúr vrátane paraventrikulárnych oxytocinergných neurónov, ktoré sa premietajú do neurohypofýzy a/alebo do extrahypotalamických oblastí mozgu (Buijs a kol., 1984; Lindvall a kol., 1984).
Zapojenie týchto dopaminergných neurónov na paraventrikulárnu úroveň pri kontrole erekcie penisu a kopulácie je podporované mikrodialýzovými štúdiami, ktoré ukazujú, že koncentrácie extracelulárneho dopamínu a 3,4-dihydroxyfenyloctovej kyseliny (DOPAC), jeho hlavného metabolitu, sú zvýšené v dialyzáte získanom z paraventrikulárne jadro sexuálne silných samcov potkanov vykazujúcich bezkontaktnú erekciu, keď sa v prítomnosti neprístupnej ovariektomizovanej samice receptujúcej estrogén + progesterón (Melis et al., 2003).
Zvýšenie koncentrácií dopamínu a DOPAC bolo ešte vyššie, keď bola povolená kopulácia s receptívnou samicou (Melis a kol., 2003), ako sa zistilo v mediálnej preoptickej oblasti (Hull a kol., 1995) a v nucleus accumbens (Pfaus a Everitt, 1995). Po druhé, niekoľko štúdií ukazuje, že erekcia penisu vyvolaná stimuláciou paraventrikulárnych D2 receptorov je sprostredkovaná oxytocínom uvoľňovaným v týchto oblastiach. Preto sa zistilo, že apomorfín podávaný v dávkach, ktoré indukujú erekciu penisu, je schopný zvýšiť koncentráciu oxytocínu nielen v plazme potkanov a opíc (Melis a kol., 1989a; Cameron a kol., 1992), ale aj v extrahypotalamických oblastiach mozgu, ako je hipokampus (Melis a kol., 1990). V súlade s týmito výsledkami sa nedávno preukázalo, že apomorfín injektovaný do paraventrikulárneho jadra v dávke, ktorá indukuje erekciu penisu, je schopný zvýšiť aj extracelulárnu koncentráciu dopamínu v nucleus accumbens, čo je účinok, ktorý znižuje antagonista oxytocínového receptora d(CH2)5Tyr(Me)2-Orn8-vazotocín injektovaný do ventrálnej tegmentálnej oblasti (Succu a kol., 2007; Melis a kol., 2009a) (pozri aj časť 4). Po tretie, bilaterálne elektrolytické lézie paraventrikulárneho jadra, ktoré takmer úplne eliminujú oxytocín z extrahypotalamických oblastí mozgu (Hawthorn a kol., 1985), rušia erekciu penisu vyvolanú apomorfínom (Argiolas a kol., 1987a) a selektívne antagonisty oxytocínových receptorov podávané do laterálnych komôr, ale nie do paraventrikulárneho jadra, znižujú erekciu penisu vyvolanú apomorfínom v závislosti od dávky s účinnosťou porovnateľnou s účinnosťou týchto zlúčenín pri blokovaní oxytocínových receptorov (Melis a kol., 1989b). Antagonisty oxytocínových receptorov sú tiež mimoriadne účinné pri znižovaní uľahčenia mužského sexuálneho správania vyvolaného nielen oxytocínom, ale aj apomorfínom (Argiolas a kol., 1988, 1989).
Pokiaľ ide o mechanizmus, ktorým D2 receptory aktivované dopamínom alebo agonistami dopamínových receptorov zvyšujú aktivitu oxytocinergných neurónov, čím uvoľňujú oxytocín v extrahypotalamických oblastiach mozgu a v mieche, početné experimentálne údaje podporujú hypotézu, že stimulácia D2 receptorov zvyšuje koncentráciu intracelulárnych iónov Ca2+ vo vnútri bunkových tiel oxytocinergných neurónov, čo vedie k aktivácii syntázy oxidu dusnatého, enzýmu závislého od Ca2+ a kalmodulínu, ktorý je prítomný v týchto bunkových telách (Vincent a Kimura, 1992; Torres a kol., 1993; Sanchez a kol., 1994; Sato-Suzuki a kol., 1998). Zvýšená produkcia oxidu dusnatého následne spôsobuje aktiváciu oxytocinergných neurónov. V súlade s tým (1) erekcii penisu vyvolanej apomorfínom zabránili organické blokátory kalciových kanálov a _-konotoxín GVIA, silný a selektívny blokátor napäťovo závislých Ca2+ kanálov typu N (McCleskey a kol., 1987), podaný do paraventrikulárneho jadra (pozri Argiolas a kol., 1990 a odkazy v ňom); (2) erekcii penisu vyvolanej apomorfínom zabránili inhibítory syntázy oxidu dusnatého podané do paraventrikulárneho jadra (Melis a kol., 1994c); a (3) apomorfín a iné agonisty D2 receptorov podávané v dávkach, ktoré indukujú erekciu penisu, zvýšili produkciu oxidu dusnatého v paraventrikulárnom dialyzáte získanom intracerebrálnou mikrodialýzou, pričom toto zvýšenie bolo znížené inhibítormi paraventrikulárnej syntázy oxidu dusnatého podávanými v dávkach, ktoré znižujú erekciu penisu vyvolanú agonistami D2 receptorov (Melis a kol., 1996). Mechanizmus, ktorým oxid dusnatý aktivuje paraventrikulárne oxytocinergné neuróny, stále nie je známy, hoci dostupné údaje naznačujú, že oxid dusnatý pôsobí ako intracelulárny posol a že guanylátcykláza nie je zapojená. V skutočnosti sa zistilo, že aktívny analóg cyklického GMP rezistentný na fosfodiesterázu, 8-brómcyklický GMP, nie je schopný vyvolať erekciu penisu po podaní do paraventrikulárneho jadra (obr. 2) (pozri Melis a Argiolas, 1995b a odkazy v nich uvedené).
Vyššie uvedená interpretácia sa často nepovažovala za presvedčivú, najmä preto, že stimulácia dopamínových D2 receptorov je zvyčajne spojená s inhibíciou, a nie s excitáciou bunkových tiel neurónov obsahujúcich tieto receptory prostredníctvom rôznych mechanizmov spojených s G proteínom (pozri Sokoloff a Schwartz, 1995). Možné vysvetlenie tejto nezrovnalosti, ktoré je v súlade s priamou stimuláciou paraventrikulárnych oxytocinergných neurónov dopamínom, však nedávno naznačil objav dopamínového D4 receptora spojeného s G proteínom , člena rodiny D2 receptorov (D2, D3 a D4), ktorého stimulácia zvyšuje prítok Ca2+ v bunkových preparátoch obsahujúcich klonovanú verziu tohto podtypu receptora (Moreland a kol., 2004). A čo je dôležitejšie, zistilo sa, že selektívny agonista D4 receptora (napr. ABT 724) (N-metyl-4-(2-kyanofenyl)piperazynil-3metylbenzamid maleát) je schopný indukovať erekciu penisu u samcov potkanov pri systémovom podávaní (Brioni a kol., 2004). Tento účinok sa nezistil u selektívneho agonistu podtypu receptora D2 PNU-95666E (R-5,6-dihydro-N,N-dimetyl-4-himidazo[4,5,1-i]chinolín-5-amín) (Hsieh a kol., 2004), ktorý tiež nedokázal zvýšiť prítok Ca2+ v bunkových preparátoch obsahujúcich klonovanú verziu podtypu receptora D4 (Brioni a kol., 2004; Moreland a kol., 2004). V súlade s vyššie uvedenou hypotézou a zisteniami sa zistilo, že PD 168 077 (N-metyl-4-(2-kyanofenyl)piperazinyl-3-metylbenzamid maleát), PIP-3EA (2-[4-(2-metoxyfenyl)piperazín-1-ylmetyl]imidazo[1,2-a]pyridín) a ďalšie selektívne agonisty D4 receptorov (Heier a kol., 1997; Melis a kol., 2006b; Löber a kol., 2009) dokážu vyvolať erekciu penisu pri systémovej injekcii, intraventrikulárnej injekcii a do paraventrikulárneho jadra, hoci menej účinne ako apomorfín. Proerektilnému účinku týchto agonistov D4 receptorov zabránil L-745,870 (3-(4-[chlórfenyl]piperazín-1-yl)-metyl-1H-pyrolo[2,3-B]pyridín trihydrochlorid), selektívny antagonista D4 receptorov (Patel a kol., 1997; Melis a kol., 2005, 2006b; Löber a kol., 2009).
Napokon, pro-erektilný účinok vyššie uvedených agonistov receptora D4 bol tiež znížený inhibítormi oxidu dusnatého-syntázy, podávanými do paraventrikulárneho jadra a d (CH2) 5Tyr (Me) 2-Orn8-vazotocínom selektívnym antagonistom oxytocínového receptora daná ICV, ale nie v paraventrikulárnom jadre. Tieto výsledky sú v súlade s hypotézou, že agonisty receptora D4 tiež stimulujú oxytocinergné neuróny aktiváciou syntázy oxidu dusnatého a uvoľňovaním oxytocínu v oblasti extrahypotalamického mozgu, čo zase uľahčuje erekciu penisu, ako je ukázané u apomorfínu a klasických agonistov D2 (Melis et al. 2005, 2006b, Löber a kol., 2009).
Vyššie uvedené zistenia tiež podporujú hypotézu, že dopamín indukuje erekciu penisu pôsobením na receptory D4 umiestnené na bunkových telách paraventrikulárnych oxytocinergných neurónov, ktoré spôsobujú zvýšený prítok Ca2+ do bunkových tiel oxytocinergných neurónov, čo vedie k zvýšenej produkcii oxidu dusnatého. Oxid dusnatý následne aktivuje oxytocinergné neuróny k uvoľňovaniu oxytocínu v extrahypotalamických oblastiach mozgu a v mieche, ako už bolo uvedené. V tejto súvislosti je potrebné poznamenať, že dopamínové receptory boli identifikované v bunkových telách oxytocinergných neurónov v paraventrikulárnom jadre len nedávno prostredníctvom dvojitých imunofluorescenčných štúdií s vysoko selektívnymi protilátkami proti receptorom D2, D3 a D4 a s protilátkami proti oxytocínu. Tieto štúdie preukázali expresiu všetkých troch podtypov D2receptorov (D2, D3 a D4), ktoré sa samostatne ko-lokalizovali v bunkových telách oxytocinergných neurónov v paraventrikulárnom jadre (a tiež v supraoptickom jadre a mediálnej preoptickej oblasti) (Baskerville a Douglas, 2008; Baskerville a kol., 2009).
Toto poskytuje silnú neuroanatomickú podporu možnosti, že agonisty dopamínu a dopamínových receptorov typu D2 indukujú erekciu penisu priamou aktiváciou oxytocinergných neurónov premietajúcich sa do extrahypotalamických oblastí mozgu uvedených vyššie , napr. miechy, ventrálnej tegmentálnej oblasti, hipokampu a amygdaly. Tieto zistenia však neposkytujú žiadnu pomoc pri identifikácii podtypu/ov receptorov D2, ktorých stimulácia spôsobuje erektilnú odpoveď. Žiaľ, žiadnu pomoc nemožno získať ani zo štúdií zameraných na identifikáciu oxytocinergných neurónov aktivovaných agonistami dopamínových receptorov v paraventrikulárnom jadre. Napriek rozdielnej aktivite na rôzne podtypy dopamínových receptorov, buď zmiešané agonisty dopamínových receptorov (napr. apomorfín), alebo selektívne agonisty D2 receptorov (napr. chinpirol, ktorý pôsobí na všetky podtypy D2 receptorov), alebo selektívne agonisty D4 receptorov spôsobujú aktiváciu oxytocinergných neurónov, merané zvýšením proteínu FOS v parvocelulárnych oxytocinergných neurónoch paraventrikulárneho jadra (Bitner a kol., 2006). Toto zistenie však bolo nedávno spochybnené, pretože zvýšenie proteínu FOS v paraventrikulárnych oxytocinergných neurónoch sa zistilo iba vtedy, keď bola erekcia penisu indukovaná chinerolánom, ktorý pôsobí hlavne na podtypy D2 a D3 receptorov, ale nie PD 168077, agonistom D4 receptora, napriek schopnosti oboch zlúčenín indukovať sexuálnu odpoveď (Baskerville a kol., 2009).
Ďalšie experimenty so selektívnymi agonistami iných subtypov receptora D2 (hlavne D2 a D3) sú potom potrebné na identifikáciu presnej úlohy každého podtypu dopamínového receptora pri kontrole erektilnej funkcie na paraventrikulárnej úrovni. V tomto ohľade, ako už bolo spomínané, apomorfín, ktorý pôsobí účinne na všetky podtypy dopamínových receptorov (pozri Brioni et al., 2004 a tam uvedené odkazy), je oveľa účinnejší než agonisty receptorov D4 pri indukcii erekcie penisu pri injekcii do paraventrikulárneho jadro. To by mohlo byť vysvetlené vyššou afinitou apomorfínu k D4 receptorom v porovnaní s agonistami testovaných agonistov D4 receptora alebo alternatívne môžu agonisti receptora D4 pôsobiť ako čiastočné agonisty receptora D4 alebo súbežná aktivácia rôznych subtypov receptora dopamínu apomorfínom môže produkujú vyššiu aktiváciu oxytocinergných neurónov sprostredkujúcich erekciu penisu, ako aktivácia pomocou agonistov receptora D2 podtypu receptora D4.
Interakcie medzi dopamínovými D1 a D2 receptormi už boli opísané pri kontrole sexuálneho správania na úrovni mediálnej preoptickej oblasti (pozri Hull a kol., 1989). V prípade, že sa potvrdí neschopnosť selektívnych agonistov D2 receptorov indukovať erekciu penisu (Hsieh a kol., 2004) (pozri však Depoortère a kol., 2009), napríklad aj po injekcii týchto zlúčenín do paraventrikulárneho jadra, mala by sa podrobne analyzovať hlavná úloha D3 receptorov samostatne alebo spolu s D4 receptormi pri aktivácii oxytocinergných neurónov sprostredkujúcich erekciu penisu (pozri Baskerville a kol., 2009). Selektívne agonisty D2 a D3 receptorov (napr. ktoré sa líšia svojou afinitou k týmto dvom podtypom receptorov in vitro najmenej o štyri/päť rádov) nie sú v súčasnosti dostupné. Z tohto dôvodu je potrebné potvrdiť ďalšími experimentmi nedávny návrh, že receptory D3 sprostredkovávajú erekciu penisu vyvolanú klasickými agonistami receptorov D2, ktorý je založený najmä na schopnosti predpokladaných antagonistov receptorov D3 charakterizovaných v experimentoch in vitro znižovať erekciu penisu vyvolanú klasickými agonistami D2, ako sú apomorfín, chinpirol a pramipexol, ktoré účinne aktivujú všetky podtypy dopamínových receptorov D2 (Collins a kol., 2009). Toto potvrdenie je potrebné aj preto, že v tejto štúdii sa nezistil žiadny účinok agonistov receptorov D4 na erekciu penisu, čo je v ostrom kontraste s výsledkami vyššie uvedených štúdií, ktoré preukazujú proerektilný účinok agonistov receptorov D4. V skutočnosti ani schopnosť apomorfínu vyvolať erekciu penisu (a zívanie) u myší s knockoutom D4 receptora s účinnosťou identickou s tou, ktorá sa pozorovala u myší divokého typu s knockoutom D4 receptora, a schopnosť antagonistov D3 receptora zrušiť apomorfínovú odpoveď u týchto zvierat (Collins a kol., 2009) nemožno považovať za definitívny dôkaz selektívnej úlohy podtypu D3 receptora pri erekcii penisu vyvolanej agonistom D2 receptora. Okrem druhových rozdielov štúdie s abláciou génov pre neurotransmitery/neuropeptidy a/alebo neurotransmitery/neuropeptidové receptory (zvieratá s knockoutom neurotransmiterov/neuropeptidov a/alebo neurotransmiterov/neuropeptidových receptorov) zvyčajne pridali ďalší zmätok a komplikácie pri potvrdzovaní domnelej sexuálnej úlohy neurotransmiterov a/alebo neuropeptidov a ich receptorov. Konkrétne, ablácia génu oxytocínu vedie k myšiam s knockoutom oxytocínu, ktoré sa pária a kopulujú normálne, akoby oxytocín nebol potrebný na párenie a kopuláciu. Aj homozygotné samice myší s knockoutom oxytocínu vykazujú normálne párenie a pôrod, hoci s výrazným zhoršením tvorby mlieka (Nishimori a kol., 1996; Young a kol., 1996). Ablácia génu kódujúceho neuronálnu syntázu oxidu dusnatého tiež vedie k myšiam s knockoutom syntázy oxidu dusnatého, ktoré sa normálne pária a kopulujú (Huang a kol., 1993). Toto sa deje napriek skutočnosti, že syntáza oxidu dusnatého produkuje oxid dusnatý, ktorý je jedným z hlavných fyziologických mediátorov erekcie penisu na úrovni penisu (Burnett a kol., 1992; Rajfer a kol., 1992) a na centrálnej úrovni v paraventrikulárnom jadre hypotalamu (Argiolas, 1994; Benelli a kol., 1995; Melis a kol., 1998). Tieto zistenia však pravdepodobne naznačujú dôležitý znak reprodukčnej fyziológie, t. j. redundanciu systémov zapojených do jej kontroly na centrálnej a periférnej úrovni.
Takáto redundancia má určite evolučný pôvod, pretože zaručuje prechod génov do ďalšej generácie pre prežitie druhu. Preto skutočnosť, že ablácia génu receptora D4 nemení proerektilný účinok apomorfínu, naznačuje, že receptory D4, ako je oxytocín a oxid dusnatý, sú len niekoľkými mediátormi pôsobiacimi v systémoch kontrolujúcich erektilnú funkciu, a nie že tieto receptory nehrajú žiadnu úlohu v kontrole erekcie penisu a sexuálneho správania. Zlyhanie agonistov D4 pri indukcii erekcie penisu pri systémovom podávaní samcom potkanov rôznych kmeňov bolo nedávno hlásené v inej štúdii (Depoortère a kol., 2009). Na rozdiel od práce Collinsa a kol. (2009) a aby bol obraz o úlohe rôznych podtypov D2 receptorov v kontrole erekcie penisu ešte viac záhadný, táto štúdia tiež ukazuje, že predpokladané selektívne antagonisty D3 receptorov podávané systémovo neboli schopné znížiť erekciu penisu indukovanú apomorfínom u samcov potkanov kmeňa citlivejšieho na proerektilný účinok apomorfínu, zatiaľ čo sexuálna reakcia (a zívanie) bola antagonizovaná selektívnym antagonistom D2 L-741,626 (3-[[4-(4-chlórfenyl)-4-hydroxypiperidín-1-yl]metyl-1H-indol), čo viedlo autorov k domnienke, že hlavnú úlohu v erekcii penisu indukovanej agonistom D2 zohrávajú skôr receptory D2 ako receptory D3 a D4 (Depoortère a kol., 2009). Nakoniec nemožno úplne vylúčiť ani možnosť, že excitačný účinok agonistov dopamínových receptorov na oxytocinergné neuróny sprostredkujúce erekciu penisu je, aspoň čiastočne, skôr nepriamy ako priamy, napr. sprostredkovaný alebo ovplyvnený zmenami v aktivite iných neurotransmiterov neuropeptidov schopných modulovať aktivitu oxytocinergných neurónov v paraventrikulárnom jadre.
3.2. Interakcia glutamovej kyseliny a oxytocínu v paraventrikulárnom jadre
Paraventrikulárne jadro hypotalamu je veľmi bohaté na synapsie obsahujúce excitačnú aminokyselinu ako neurotransmiter (napr. kyselinu glutámovú a kyselinu asparágovú ) (Van Den Pol, 1991). Excitačné aminokyseliny v tomto jadre sa podieľajú na mnohých funkciách vrátane erekcie penisu a sexuálneho správania (Roeling a kol., 1991; Melis a kol., 1994b, 2000, 2004b). V súlade s tým sa zistilo, že kyselina N-metyl-d-asparágová (NMDA), selektívny agonista podtypu receptora NMDA, ale nie kyselina (±)-_-amino-3-hydroxy-5-metyl-izoxazol-4-propiónová (AMPA), selektívny agonista podtypu receptora AMPA, alebo kyselina (±)-trans(1)-amino-1,3-cyklopentándikarboxylová (ACPD), selektívny agonista podtypu metabotropného receptora, je schopná vyvolať erekciu penisu po injekčnom podaní do paraventrikulárneho jadra voľne sa pohybujúcich potkanov (Melis a kol., 1994b). Proerektilný účinok 948 MR Melis, A. Argiolas / Neuroscience and Biobehavioral Reviews 35 (2011) 939-955 NMDA bol zabránený (+)MK-801, nekompetitívnym antagonistom NMDA receptorov (Woodruff a kol., 1987), injekčne podaným do paraventrikulárneho jadra (Melis a kol., 1994b). V súlade s týmito výsledkami sa v telemetrických štúdiách zameraných na monitorovanie intrakavernózneho tlaku zistilo, že NMDA je oveľa aktívnejší ako agonisty iných podtypov excitačných aminokyselinových receptorov po injekčnom podaní do paraventrikulárneho jadra pri zvyšovaní intrakavernózneho tlaku u bdelých alebo anestetizovaných samcov potkanov (Zahran a kol., 2000; Chen a Chang, 2003).
Ako bolo uvedené vyššie v prípade oxytocínu a dopamínu, je pravdepodobné, že NMDA receptory sprostredkujúce erekciu penisu sa nachádzajú v bunkových telách oxytocinergných neurónov, pretože nervové zakončenia excitačných aminokyselín narážajú na telá oxytocinergných buniek v paraventrikulárnom jadre (Van Den Pol, 1991). Analogicky s tým, čo sa zistilo u agonistov dopamínových receptorov, proerektilný účinok NMDA je zjavne sprostredkovaný aktiváciou oxytocinergnej neurotransmisie, ktorá je zrušená antagonistom oxytocínu d(CH2)5Tyr(Me)2-Orn8-vazotocínom podaným icv, ale nie do paraventrikulárneho jadra (pozri Argiolas a Melis, 1995, 2004, 2005 a odkazy v nich uvedené). Podobne je aktivácia oxytocinergickej neurotransmisie indukovaná NMDA tiež sekundárna k aktivácii syntázy oxidu dusnatého, pretože erekcii penisu indukovanej NMDA zabraňujú inhibítory syntázy oxidu dusnatého (metylester N-nitro-N-metyl-arginínu a N-metyl-tio-l-citrulín) podávané do paraventrikulárneho jadra a NMDA injektovaný do paraventrikulárneho jadra v dávkach, ktoré indukujú erekciu penisu, zvyšuje produkciu oxidu dusnatého v hypotalamickom jadre (pozri Argiolas a Melis, 1995, 2004, 2005 a odkazy v nich uvedené). Čo sa týka agonistov dopamínových receptorov, aktivácia syntázy oxidu dusnatého indukovaná NMDA môže byť tiež sekundárna k zvýšenému prítoku Ca2+ do telies oxytocinergných buniek prostredníctvom NMDA receptorov spojených s Ca2+ kanálmi, ako je ukázané na niekoľkých neurálnych preparátoch (prehľad pozri Snyder, 1992; Southam a Garthwaite, 1993; Schuman a Madison, 1994 a odkazy v nich uvedené). Oxid dusnatý následne aktivuje oxytocinergnú neurotransmisiu (pozri vyššie). Pôvod glutamatergných projekcií, ktoré aktivujú paraventrikulárne oxytocinergné neuróny sprostredkujúce erekciu penisu, nie je známy, hoci niektoré neuroanatomické a elektrofyziologické dôkazy naznačujú, že môžu pochádzať, aspoň čiastočne, z hipokampu (Saphier a Feldman, 1987; Chen a kol., 1992). Hoci je potrebný ďalší výskum na lepšiu charakterizáciu pôvodu glutamátergických projekcií do paraventrikulárneho jadra, štúdie mikrodialýzy jasne podporujú účasť kyseliny glutámovej v paraventrikulárnom jadre na kontrole erekcie penisu a sexuálneho správania. V súlade s tým boli extracelulárne koncentrácie kyseliny glutámovej a kyseliny asparágovej zvýšené v dialyzáte získanom z paraventrikulárneho jadra samcov potkanov, ktoré vykazovali bezkontaktné erekcie, keď boli umiestnené do prítomnosti nedostupných receptívnych samíc potkanov stimulovaných estrogénom + progesterónom (Melis a kol., 2004b), pričom erekcie penisu sú tiež sprostredkované aktiváciou centrálneho oxytocínergického prenosu (Melis a kol., 1999a,b). Takéto zvýšenia boli ešte vyššie, keď bola povolená kopulácia s receptívnou samicou (Melis a kol., 2004a). V súlade s hypotézou, že počas erekcie a kopulácie penisu dochádza v paraventrikulárnom jadre k zvýšenej aktivite excitačných aminokyselín, sú bezkontaktné erekcie aj kopulačné správanie (počas ktorého v kopule dochádza k erekcii penisu) znížené blokádou NMDA receptorov v paraventrikulárnom jadre a toto zníženie je nasledované znížením zvýšenej produkcie oxidu dusnatého, ku ktorému dochádza v tomto hypotalamickom jadre v týchto fyziologických kontextoch (Melis a kol., 2000). Zvýšenie extracelulárnej koncentrácie kyseliny glutámovej sekundárne k zníženému uvoľňovaniu GABA z GABAergných nervových zakončení dopadajúcich na excitačné aminokyselinové synapsie umiestnené vedľa telies oxytocinergných buniek sa tiež zistilo v paraventrikulárnom jadre po blokáde kanabinoidných CB1 receptorov antagonistom CB1 SR 141761A, podávaným do laterálnych komôr alebo priamo do paraventrikulárneho jadra v dávkach, ktoré indukujú erekciu penisu (pozri Succu a kol., 2006; Castelli a kol., 2007). Takéto zvýšenie viedlo k aktivácii syntázy oxidu dusnatého v bunkových telách oxytocinergných neurónov, čím sa zvýšila produkcia oxidu dusnatého. Oxid dusnatý následne aktivuje oxytocinergné neuróny sprostredkujúce erekciu penisu, ako je opísané vyššie. V súlade s týmto mechanizmom bola erekcia penisu indukovaná SR 141761A znížená blokádou NMDA receptorov a inhibítormi syntázy oxidu dusnatého, ale nie blokádou dopamínových alebo oxytocínových receptorov v paraventrikulárnom jadre, zatiaľ čo jej bolo zabránené blokádou centrálnych oxytocínových receptorov antagonistami oxytocínových receptorov podanými icv (Melis a kol., 2004a, 2006a).
3.3. Oxytocín-dopamínová interakcia vo ventrálnej tegmentálnej oblasti
Oxytocín indukuje erekciu penisu, keď je injikovaný do kaudálnej časti ventrálnej tegmentálnej oblasti spôsobom závislým od dávky(Melis a kol., 2007). Najnižšia aktívna dávka, ktorá bola injektovaná jednostranne, bola 20 ng, zatiaľ čo najvyššia testovaná dávka bola 100 ng. Účinok oxytocínu je sprostredkovaný aktiváciou oxytocinergných receptorov, pretože sexuálna odpoveď je zrušená predchádzajúcou injekciou oxytocínového antagonistu d (CH2) 5Tyr (Me) 2-Orn8-vazotocínu v kaudálnej ventrálnej tegmentálnej oblasti. Tieto receptory sú lokalizované v bunkových telách dopamínergných neurónov, ktoré prevažne prechádzajú do jadra jadra accumbens. Z toho vyplýva, že dvojitá imunofluorescenčná štúdia (1) ukazuje, že v kaudálnej ventrálnej tegmentálnej oblasti sú oxytocinergné vlákna v tesnom kontakte s bunkovými telieskami dopaminergných neurónov, z ktorých väčšina bola pozitívne značená pre tyrozín-hydroxylázu a obsahovala retrográdny marker Fluorogold (Melis a kol., 2007) a (2) ventrálna tegmentová oblasť vyvolaná oxytocínom vyvolaná erekcia penisu sa vyskytuje súčasne so zvýšením koncentrácie extracelulárneho dopamínu v dialyzáte získanom z plášťa nucleus accumbens (Melis a kol., 2007). Erekcia penisu indukovaná oxytocínom sa vyskytuje súčasne so zvýšením produkcie oxidu dusnatého vo ventrálnej tegmentálnej oblasti, pričom obidve odpovede sú antagonizované nielen d (CH2) 5Tyr (Me) 2-Orn8-vazotocínom a inhibítorom syntázy oxidu dusnatého S- metyl-tio-1-citrulín, ale tiež _-konotoxínom, blokátorom kanálov závislých na Ca2 + a ODQ (1H- [1,2,4] oxadiazolom [4,3-a] chinoxalin-1- cyklázy, všetky uvedené v kaudálnej ventrálnej tegmentálnej oblasti pred oxytocínom (Succu et al., 2008). Keďže mnohé z dopamínergických buniek označených Fluorogoldom, ktoré sú v kontakte s oxytocinergnými vláknami, ktoré boli pozitívne na tyrozínhydroxylázu v kaudálnej ventrálnej tegmentálnej oblasti, boli tiež pozitívne značené pre syntézu oxidu dusnatého a guanylátcyklázu (Succu et al., 2008), oxytocín vyvolaná erekcia penisu môže byť sprostredkovaná nasledujúcim mechanizmom. Aktivácia oxytocinergných receptorov v dopamínergných bunkových telieskach peptidom zvyšuje influx Ca2 + vo vnútri bunkových teliesok dopaminergných neurónov. To aktivuje syntázu oxidu dusnatého, enzýmu závislého od Ca2 + -calmodulínu, čím sa zvyšuje produkcia oxidu dusnatého. Oxid dusnatý zase aktivuje guanylátcyklázu, čo vedie k zvýšeniu koncentrácie cyklickej GMP. Cyklický GMP aktivuje dopaminergné neuróny vyčnievajúce do nucleus accumbens. Úloha cyklickej GMP pri erekcii penisu indukovanej oxytocínom vstreknutým do kaudálnej ventrálnej tegmentálnej oblasti je tiež podporená schopnosťou 8-brómcyklického GMP, aktívneho fosfodiesterázu rezistentného analógu cyklického GMP, na vyvolanie erekcie penisu po injekcii do chvostovej ventrálnej tegmentálnej oblasti a na zvýšenie extracelulárneho dopamínu v dialyzáte z nucleus accumbens (Succu et al., 2008, Melis et al., 2009a). To je v rozpore s mechanizmom, ktorým oxid dusnatý aktivuje oxytocinergné neuróny v paraventrikulárnom jadre, pretože 8-brómcyklický GMP nie je schopný vyvolať erekciu penisu po injekcii do tohto jadra (Melis a Argiolas, 1995b) (obr. 2). Úlohu dopamínu uvoľneného v nucleus accumbens pri erekcii penisu vyvolanej oxytocínom injekčne podaným do kaudálnej ventrálnej tegmentálnej oblasti podporuje schopnosť haloperidolu, silného antagonistu dopamínových receptorov injekčne podaného do nucleus accumbens, znížiť oxytocínovú odpoveď (Melis a kol., 2007).Pokiaľ ide o nervové dráhy aktivované dopamínom v nucleus accumbens vedúce k erekcii penisu, tieto sú stále neznáme. Dostupné údaje však naznačujú, že tieto dráhy aktivujú dopamínovú neurotransmisiu v paraventrikulárnom jadre hypotalamu. Preto sa erekcia penicilu vyvolaná oxytocínom vyskytuje súbežne so zvýšením extracelulárneho dopamínu nielen v nucleus accumbens, ale tiež v paraventrikulárnom jadre a je antagonizovaný antagonistom dopamínového receptora haloperidolom vstreknutým do paraventrikulárneho jadra (Melis et al., 2007). Tieto výsledky spoločne podporujú myšlienku, že oxytocinergné neuróny pochádzajúce z paraventrikulárneho jadra a vyčnievajú do kaudálnej ventrálnej tegmentovej oblasti pri aktivovanom uvoľňovaní oxytocínu v tejto oblasti, čím aktivujú NO-cyklický GMP signalizačný systém, ktorý naopak aktivuje mezolimbické dopaminergné neuróny (Melis a kol., 2007, 2009a, Succu a kol., 2008). Dopamín uvoľňovaný v nucleus accumbens spätne aktivuje nervové dráhy vedúce k aktivácii inertno-hypotalamických dopaminergných neurónov, ktoré stimulujú paraventrikulárne oxytocinergné neuróny vyčnievajúce do miechy sprostredkujúce erekciu penisu. Súčasne dopamín uvoľnený v paraventrikulárnom jadre môže tiež aktivovať oxytocinergné neuróny, ktoré vyčnievajú do extra-hypotalamických oblastí mozgu, ako je ventrálna tegmentálna oblasť, hipokampus, amygdala a možno aj iné oblasti mozgu.
Ako bolo uvedené vyššie, v súlade s touto hypotézou, apomorfín injektovaný do paraventrikulárneho jadra v dávke, ktorá indukuje erekciu penisu, tiež zvyšuje extracelulárnu koncentráciu dopamínu v nucleus accumbens, čo je účinok znížený antagonistom oxytocínového receptora d(CH2)5Tyr(Me)2-Orn8-vazotocínom injektovaným do ventrálnej tegmentálnej oblasti (Succu a kol., 2007; Melis a kol., 2009a). Vyššie uvedené nervové dráhy by spolu mohli tvoriť hypotetický nervový obvod zahŕňajúci dopamín, oxytocín a iné neurotransmitery (napr. kyselinu glutámovú, pozri nižšie), ktoré ovplyvňujú nielen sexuálny výkon, ale aj sexuálnu motiváciu a sexuálne uspokojenie (pozri časť 4).
3.4. Interakcia oxytocín-glutámovej kyseliny vo ventrálnom subiculu hipokampu
Oxytocín indukuje erekciu penisu pri injekcii do ventrálnej, ale nie do zadnej čiastočky, v závislosti od dávky (Melis et al., 2009b). Sexuálna odpoveď je sprostredkovaná stimuláciou oxytocínových receptorov, ktorá bola zrušená predchádzajúcou injekciou d (CH2) 5Tyr (Me) 2-Orn8-vazotocínu podávaného na rovnaké miesto oxytocínu, ako sa nachádza v iných oblastiach mozgu (pozri vyššie) , Pokiaľ ide o lokalizáciu týchto receptorov, dostupné údaje naznačujú, že sú lokalizované v bunkových telách neurónov bohatých na syntézu oxidu dusnatého.
Mikrodialýzové štúdie teda ukazujú, že oxytocínom indukovaná erekcia penisu sa vyskytuje súbežne so zvýšením produkcie oxidu dusnatého vo ventrálnom subikule a toto zvýšenie sa eliminuje nielen predchádzajúcou injekciou inhibítora syntázy oxidu dusnatého S-metyl-tio-l-citrulínu a hemoglobínu, ktorý je zachytávačom oxidu dusnatého, ale aj d(CH2)5Tyr(Me)2-Orn8-vazotocínom, pričom všetky sa podávali do rovnakého miesta oxytocínu v dávkach, ktoré antagonizujú erekciu penisu (Melis a kol., 2010). A čo je dôležitejšie, oxytocínom indukovaná erekcia penisu sa vyskytuje aj súbežne so zvýšením koncentrácie extracelulárnej kyseliny glutámovej vo ventrálnom subikule, ktorá je len čiastočne antagonizovaná nekompetitívnym antagonistom NMDA receptora (+)MK-801 podávaným do ventrálneho subikula (Melis a kol., 2010). Tieto výsledky spoločne naznačujú, že novovytvorený oxid dusnatý, pôsobením ako medzibunkový posol, aktivuje neurotransmisiu kyseliny glutámovej, čo vedie k erekcii penisu, pravdepodobne prostredníctvom neurálnych eferentných projekcií z ventrálneho subikula do extrahipokampálnych oblastí mozgu. V súlade s touto hypotézou NMDA injekčne podaný do ventrálneho subikula indukuje erekciu penisu spôsobom závislým od dávky a tento účinok je úplne antagonizovaný predchádzajúcou injekciou (+)MK-801 do rovnakého miesta, ale nie S-metyl-tio-l-citrulínom, hemoglobínom alebo d(CH2)5Tyr(Me)2-Orn8-vazotocínom (Melis a kol., 2010). Pokiaľ ide o neurálne eferentné dráhy premietajúce sa do extrahipokampálnych oblastí mozgu aktivovaných excitačnými aminokyselinami (t. j. kyselinou glutámovou) vo ventrálnom subikule, je pravdepodobné, že sú glutamatergické, rovnako ako väčšina neurálnych eferentných projekcií hipokampu. V súčasnosti by sa dalo len predpokladať, že tieto projekcie modulujú aktivitu mezolimbických dopaminergných neurónov, ktoré následne modulujú aktivitu incerto-hypotalamických dopaminergných neurónov v paraventrikulárnom jadre, čo vedie k aktivácii oxytocinergných neurónov sprostredkujúcich erekciu penisu, ako už bolo uvedené (pozri vyššie).
V súlade s tým sa erekcia penisu vyvolaná oxytocínom do ventrálnej subikuly vyskytuje súbežne so zvýšením koncentrácie extracelulárneho dopamínu v schránke nucleus accumbens a toto zvýšenie, podobne ako erekcia penisu, je zrušené podaním d(CH2)5Tyr(Me)2-Orn8-vazotocínu do ventrálnej subikuly pred oxytocínom (Melis a kol., 2009b). Navyše, keďže erekcia penisu vyvolaná oxytocínom vo ventrálnej subikulárnej oblasti je tiež znížená injekciou (+)MK-801 do ventrálnej tegmentálnej oblasti, ale nie do nucleus accumbens (Melis a kol., 2009b) a dochádza k nej súbežne so zvýšením extracelulárnej kyseliny glutámovej vo ventrálnej tegmentálnej oblasti, ale nie v nucleus accumbens, pričom obe tieto reakcie sú zrušené injekciou d(CH2)5Tyr(Me)-Orn8-vazotocínu do ventrálnej subikulárnej oblasti pred oxytocínom (pozri obr. 3), je pravdepodobné, že aktivácia mezolimbických dopaminergných neurónov je sekundárna k zvýšenej glutamátergickej neurotransmisii vo ventrálnej tegmentálnej oblasti. To naznačuje, že vo ventrálnej tegmentálnej oblasti existuje interakcia medzi kyselinou glutámovou a dopamínom, ktorá riadi erekciu penisu. Ďalšie štúdie sú potrebné na zistenie, či sú proerektilné eferentné glutametrické dráhy zo subikula do ventrálnej tegmentálnej oblasti priame alebo nepriame, t. j. cez prefrontálny kortex alebo iné oblasti mozgu (pozri Melis a kol., 2009b a odkazy v ňom uvedené). Keďže paraventrikulárne jadro tiež prijíma glutamátergné projekcie z hipokampu (pozri vyššie a Saphier a Feldman, 1987) a kyselina glutámová aktivuje paraventrikulárne oxytocinergné neuróny vrátane tých, ktoré projekujú do ventrálnej tegmentálnej oblasti (pozri Argiolas a Melis, 2005 a odkazy v nich uvedené) a oxytocín vo ventrálnej tegmentálnej oblasti indukuje erekciu penisu a zvyšuje aktivitu mezolimbických dopaminergných neurónov (pozri vyššie), je lákavé špekulovať, že paraventrikulárne oxytocinergné neuróny môžu byť tiež zapojené, aspoň čiastočne, do aktivácie mezolimbických dopaminergných neurónov oxytocínom injikovaným do ventrálneho subikula (pozri časť 4).
4. Záverečné poznámky
Vyššie uvedené štúdie potvrdzujú a rozširujú skoršie zistenia, ktoré ukazujú, že u samcov potkanov hrá oxytocín kľúčovú úlohu v centrálnej kontrole erekcie penisu na úrovni paraventrikulárneho jadra hypotalamu a miechy. Najmä najnovšie štúdie ukazujú, že oxytocín ovplyvňuje erekciu penisu aj pôsobením v iných oblastiach mozgu, t. j. vo ventrálnej tegmentálnej oblasti, ventrálnom subikule a posteromediálnom kortikálnom jadre amygdaly.
Na paraventrikulárnej úrovni je najdôležitejším novým zistením pravdepodobne objav expresie všetkých dopamínových receptorov rodiny D2 (D2, D3 a D4) v bunkových telách oxytocinergných neurónov v paraventrikulárnom jadre (a v supraoptickom jadre a mediálnej preoptickej oblasti) (Baskerville a Douglas, 2008; Baskerville a kol., 2009). To poskytuje silnú neuroanatomickú podporu hypotéze, že dopamín a agonisty dopamínových receptorov môžu priamo aktivovať oxytocinergné neuróny zapojené do erektilnej funkcie a premietať sa nielen do miechy, ale aj do extrahypotalamických oblastí mozgu . V tomto ohľade je tiež dôležitý objav, že zvýšenie intrakavernózneho tlaku vyvolané agonistami dopamínových receptorov je znížené blokádou oxytocinergných receptorov v lumbosakrálnej mieche (Baskerville a kol., 2009). Hoci sa takéto dôkazy získali u anestetizovaných samcov potkanov, toto zistenie potvrdzuje aktiváciu paraventrikulo-spinálnej oxytocinergnej zostupnej dráhy zapojenej do erekcie penisu vyvolanej agonistami dopamínových receptorov. Stále však treba zistiť, či je erekcia penisu vyvolaná stimuláciou dopamínových receptorov prítomných v telách oxytocinergných buniek sekundárna k aktivácii špecifického podtypu dopamínového receptora z rodiny D2 (D2, D3 alebo D4), alebo či tieto podtypy receptorov spolupracujú pri modulácii erektilnej odpovede, pravdepodobne rôznymi spôsobmi v závislosti od kontextu, v ktorom k erekcii penisu dochádza (pozri Moreland a kol., 2004; Enguehard-Gueiffier a kol., 2006; Melis a kol., 2006a,b; Löber a kol., 2009; Collins a kol., 2009; Depoortère a kol., 2009; Baskerville a kol., 2009).
Ďalším dôležitým novým zistením je, že oxytocín indukuje erekciu penisu, keď je injikovaný nielen do paraventrikulárneho jadra alebo do oblasti CA1 hipokampu, ale tiež do ventrálnej tegmentálnej oblasti, ventrálnej subiculum a posteromediálneho kortikálneho jadra amygdaly. Tieto oblasti mozgu neboli testované v predchádzajúcich štúdiách, ktoré ukazujú, že oxytocín zvyšuje spontánne epizódy erekcie penisu u samcov potkanov, aj keď dostávajú ako oxybotinergné projekcie lumbosakrálnej miechy z paraventrikulárneho jadra. Oxytocín skutočne bol schopný zvýšiť spontánne epizódy erekcie penisu, ktoré sa vyskytujú u dospelých potkanov samčieho pohlavia bez prítomnosti sexuálnych podnetov, ako sú tie, ktoré pochádzajú z prítomnosti prístupného alebo nedostupného recepčného samice potkana ovariektomizovaného (estrogén-progesterónom pripraveného) manipulácia s pohlavnými orgánmi pri vstreknutí do paraventrikulárneho jadra a CA1 poľa hipokampu, ale nie v dorzálnom subiculu, laterálnej prepážke, kaudátovom jadre, mediálnej preoptickej oblasti, ventromediálnom jadre a superoptickom jadre (Melis a kol. , 1986). Vo všetkých týchto štúdiách sa erekcia penisu zvyčajne spočítala, keď sa penis vylúčil z penisu z pozorovateľa, ktorý nevedel o danej liečbe priamo počas experimentu alebo neskôr sledovaním experimentu zaznamenaného na videokazetu s videokamerou. Každá epizóda erekcie penisu trvá 0.5-1 min a zvyčajne je sprevádzaná ozdobou penisu a / alebo flexi bedrového kĺbu. Pri týchto potkanoch sa zvyčajne neuskutočňuje žiadny pokus na zistenie účinku sexuálnej skúsenosti, veku, alebo ak sa tieto krysy môžu rozdeliť na nízke alebo vysoké odpovede na účinok pro-erekcie oxytocínu injikovaného do rôznych oblastí mozgu. To platí aj pre väčšinu štúdií týkajúcich sa pro-erektilného účinku iných neuropeptidov a liekov, ktoré zvyšujú spontánne epizódy erekcie penisu, vrátane agonistov dopamínu, excitačných aminokyselín, ACTH-MSH, hexarelínu a VGF peptidov. Avšak pro-erektilný účinok týchto zlúčenín bol opakovane potvrdený telemetrickými metódami, ktoré určujú výskyt erekcie penisu zvýšením intracavernózneho tlaku, ku ktorému dochádza spontánne alebo po podaní týchto zlúčenín rôznymi cestami, tj systémovo, intracerebroventrikulárne alebo priamo do špecifických mozgových jadier po implantácii tlakového mikrotransduktora priamo do kavernóznych korpusov (pozri Bernabè et al., 1999). Vo ventrálnej tegmentálnej oblasti, ventrálna subiculum a posteromediálne jadro amygdaly tiež oxytocín indukuje erekciu penisu pôsobením na oxytocinergné receptory. To vedie k aktivácii mezolimbických dopaminergných neurónov pochádzajúcich z ventrálnej tegmentálnej oblasti a vystupujúcej do plášťa nucleus accumbens, meraná zvýšenou koncentráciou extracelulárneho dopamínu v dialyzáte získanom z plášťa nucleus accumbens a znížením erektilnej odozvy indukovanej peptidom injikovaným do týchto extra-hypotalamických oblastí, ktoré sa nachádzajú po blokáde dopaminergných receptorov v nucleus accumbens (pozri nižšie). Pokiaľ ide o mechanizmy aktivované stimuláciou oxytocinergných receptorov v týchto oblastiach mozgu, ktoré vedú k aktivácii mezolimbických dopaminergných neurónov a k erekcii penisu, sú najlepšie objasnené tie, ktoré sa vyskytujú v kaudálnej ventrálnej tegmentálnej oblasti. V skutočnosti tu výsledky farmakologickej a imuno-fluorescencie ukazujú, že oxytocínové nervové zakončenia narážajú na bunkové telieska dopaminergných neurónov, ktoré vyčnievajú do plášťa jadra accumbens (Melis et al., 2007, 2009a, Succu a kol., 2008). Mnohé z týchto neurónov sú bohaté na syntézu oxidu dusnatého a na guanylátcyklázu. Stimulácia oxytocinergných receptorov v bunkových telách týchto dopaminergných neurónov spôsobuje aktiváciu syntázy oxidu dusnatého, čo vedie k zvýšenému produkcii oxidu dusnatého. Oxid dusnatý zase aktivuje guanylátcyklázu, čím zvyšuje koncentráciu cyklickej GMP, čo vedie k aktivácii mezolimbických dopaminergných neurónov a k uvoľňovaniu dopamínu v nucleus accumbens, merané zvýšením extracelulárneho dopamínu v dialyzáte z nucleus accumbens získaného intramolekulárnou mikrodialýzou (Succu et al., 2008 ). Dopamín uvoľňovaný v nucleus accumbens zase aktivuje nervové dráhy vedúce k erekcii penisu. Toto je podporené schopnosťou antagonistov dopamínového receptora haloperidolu a / alebo cis-flupentixolu injikovaných do nucleus accumbens na zníženie erekcie penilu indukovanej oxytocínom na tektonickej oblasti (Succu et al., 2008). Jedna z pro-erektilných dráh sa zdá, že aktivuje incerto-hypotalamické dopaminergné neuróny, najmä tie, ktoré prechádzajú do bunkových teliesok paraventrikulárnych oxytocinergných neurónov. V skutočnosti oxytocín injikovaný do kaudálnej ventrálnej tegmentálnej oblasti zvyšuje extracelulárny dopamín nielen v nucleus accumbens, ale aj v paraventrikulárnom jadre a blokáda dopamínových receptorov v paraventrikulárnom jadre výrazne znižuje erekciu penilu vyvolanú oxytocínom v oblasti tektonickej oblasti (Succu et al. , 2007, 2008, Melis a kol., 2007, 2009a). Existencia týchto jadier accumbens dopamín-paraventrikulárne dopamín-paraventrikulárne oxytocín-ventrálne tegmentové oblasti oxytocin-dopamínové väzby je tiež navrhnutá schopnosťou pro-erektilnej dávky apomorfínu a agonisty PD4 receptora D168077 injektovaného do paraventrikulárneho jadra na zvýšenie extracelulárneho dopamínu v jadre jadra accumbens (Succu et al., 2007), odpoveď ktorý je zrušený d (CH2) 5Tyr (Me) -Orn8-vazotocín podávaným do ventrálnej tegmentálnej oblasti (Melis et al., 2009a, pozri tiež nižšie). Je však potrebná ďalšia práca na identifikáciu nervových dráh, ktoré spájajú jadro accumbens s inertno-hypotalamickým dopaminergným systémom.
Mechanizmus, ktorým oxytocín indukuje erekciu penisu a aktivuje mezolimbické dopaminergné neuróny, keď je injekčne podaný do ventrálnej subšílu alebo do posteromediálneho jadra amygády, je v súčasnosti iba čiastočne chápaný. Aj v týchto oblastiach oxytocín aktivuje svoje vlastné receptory, čo vedie k aktivácii syntázy oxidu dusnatého, čím sa zvyšuje produkcia oxidu dusnatého. Oxid dusnatý zase aktivuje neznáme eferentné projekcie, ktoré zrejme zvyšujú glutamatergickú neurotransmisiu vo ventrálnej tegmentálnej oblasti. Kyselina glutámová potom stimuluje mezolimbické dopaminergné neuróny vedúce k erekcii penisu.Táto hypotéza je podporovaná hlavne schopnosťou oxytocínu vstreknutého do ventrálneho subiculu na zvýšenie extracelulárnej kyseliny glutámovej vo ventrálnej tegmentovej oblasti (obr. 3) a nekompetitívneho antagonistu NMDA receptora (+) MK-801 injikovaného do ventrálnej tegmentálnej oblasti, ale nie v nucleus accumbens, na zníženie erekcie penisu indukovanej oxytocínom injikovaným buď do ventrálnej čiastočky alebo do posteromediálneho jadra amygdaly (Melis a kol., 2009b). V súčasnosti sú k dispozícii ďalšie podrobnosti pre erekciu penilu vyvolanú oxytocínom vyvolaným ventrikulárnym subiculom. Uvedená oxytocínom indukovaná erekcia penisu sa zdá byť sekundárna pre aktiváciu oxytocinergných receptorov umiestnených v bunkových telách neurónov obsahujúcich oxid dusnatý-syntázu. Toto spôsobuje zvýšenie produkcie oxidu dusnatého, ktorý aktivuje glutamatergickú neurotransmisiu tým, že pôsobí ako medzibunkový posol s mechanizmom podobným mechanizmu, ktorý je opísaný pre dlhodobé potenciovanie (pozri Snyder, 1992, Southam a Garthwaite, 1993, Schuman a Madison, 2004) , V súlade s touto hypotézou vzniká oxytocínom vyvolaná erekcia penisu súčasne so zvýšením extracelulárnej kyseliny glutámovej v dialyzáte z ventrálneho subiculu a stimulácia receptorov excitačných aminokyselín vo ventrálnom subiculume pomocou NMDA vyvoláva erekciu penisu. Kyselina glutámová zase aktivuje nervové eferentné projekcie, ktoré vedú k aktivácii mezolimbických dopaminergných neurónov vo ventrálnej tegmentálnej oblasti, ako je uvedené vyššie. Ak sú tieto mechanizmy funkčné aj v posteromediálnom jadre amygády, v súčasnosti nie je známe. Okrem toho sú potrebné ďalšie štúdie, ktoré dokazujú, že (1) oxytocinergné nervové zakončenia a receptory vo ventrálnom čiastočku a v posteromediálnom jadre amygády sú lokalizované v bunkových telách neurónov obsahujúcich oxid dusnatý-syntázu (2), ak sú tieto neuróny nakoniec pod kontrolou excitačných aminokyselín (glutamatergických) synapsií a (3) na identifikáciu signalizačného systému aktivovaného oxidom dusičným. Z tohto hľadiska je pozoruhodné, že schopnosť oxytocínu zvyšovať aktivitu oxidu dusnatého syntázy v bunkových telách dopamínergných neurónov v kaudálnej ventrálnej tegmentálnej oblasti a stále neznámych neurónov vo ventrálnom čiastočku a posteromediálnom jadre amygdaly, schopnosť oxytocínu aktivovať syntézu oxidu dusnatého v bunkových telách oxytocinergných neurónov v paraventrikulárnom jadre (Melis et al., 1997). Avšak zatiaľ čo vo ventrálnej tegmentálnej oblasti zvýšená produkcia oxidu dusnatého v bunkových telách dopamínergných neurónov vedie k aktivácii týchto neurónov aktiváciou guanylátcyklázy a zvyšovaním cyklickej GMP, nevzniká to v paraventrikulárnom jadre. Podľa toho 8-brómcyklický GMP, vstreknutý do paraventrikulárneho jadra, neindukuje erekciu penisu, zatiaľ čo to nastane pri injekcii do ventrálnej tegmentovej oblasti. Iná signalizačná dráha, odlišná od oxidu cyklického systému GMP, sa potom zapája na paraventrikulárnu úroveň pri aktivácii oxytocinergných neurónov sprostredkujúcich erekciu penisu endogénnym a / alebo exogénnym oxidom dusnatým (Melis a Argiolas, 1995b, Melis a kol., 1997) (Obr. , 1). Na druhej strane sa zdá, že cyklická GMP v ventrálnej tegmentálnej oblasti hrá tiež kľúčovú úlohu pri aktivácii mezolimbických dopamínergných neurónov a pri zvyšovaní extracelulárneho dopamínu vyskytujúceho sa v dialyzáte získanom zo škrupiny jadra accumbens samcov potkanov vybrané na zobrazenie alebo neexpláciu erekcie penisu bez kontaktu, keď sa uvádza v prítomnosti nedosiahnuteľného ovariektomizovaného receptívneho (estrogén + progesterón liečeného) samice potkana. V týchto experimentálnych podmienkach, u samcov potkanov, ktoré vykazujú nekontaktnú penisovú erekciu, sa zistí nárast koncentrácie extracelulárneho dopamínu, ako sa očakávalo a toto zvýšenie sa ďalej zvyšuje, hoci len skromne, inhibítormi fosfodiesterázy podávanými do kaudálnej ventrálnej tegmentovej oblasti (Sanna et al., 2009). Naopak, u samcov potkanov, ktoré nevykazovali bezkontaktnú erekciu, u ktorých sa nezistilo žiadne výrazné zvýšenie extracelulárneho dopamínu v nucleus accumbens, sa extracelulárna koncentrácia dopamínu výrazne zvýšila po podaní inhibítorov fosfodiesterázy do kaudálnej ventrálnej tegmentálnej oblasti a pozorovali sa bezkontaktné erekcie (Sanna a kol., 2009).
Schopnosť oxytocínu injikovaného do ventrálnej tegmentálnej oblasti, v ventrálnej čiastočke av posteromediálnom kortikálnom jadre amygdaly spolu s agonistami dopamínu vstreknutými do paraventrikulárneho jadra, na vyvolanie erekcie penisu a na aktiváciu mezolimbických dopaminergných neurónov si zaslúži určitý komentár , Po prvé, mechanizmy podobné tým, ktoré boli spomenuté vyššie, môžu byť účinné, ak nastane erekcia penisu vo fyziologickom kontexte, napríklad počas kopulácie (keď sa vyskytnú erekcie penisu) alebo počas erekcie penisu bez kontaktu. Tieto erekcie sú feromónmi sprostredkované erekcie penisu nerozlíšiteľné od tých, ktoré sú indukované liečivami alebo oxytocínom a ktoré sa vyskytujú, keď sú sexuálne silné samce potkanov umiestnené v prítomnosti nedostupného recepčného samice potkana (ovariektomizované estrogén + progesterón primárne) a sú považované za index sexuálnej (Sachs, 1997, 2007). Hoci tieto výsledky nepreukazujú, že oxytocín v týchto oblastiach hrá úlohu pri erekcii penisu vyskytujúceho sa vo fyziologickom kontexte alebo po podaní lieku, pridávajú ďalšiu silu k skorým nálezom, čo naznačuje, že tieto oblasti mozgu patria k tým, kde oxytocín podávaný centrálne pôsobí na zvýšenie nielen spontánne epizódy erekcie penisu pozorované po liekoch proti erekcii, ale aj zlepšenie sexuálneho správania mužov (a žien) (pozri Argiolas a Melis, 2004 a odkazy v nich). V súlade s tým sa koncentrácia oxytocínu zvyšuje v hipokampe samcov potkanov liečených pro-erektilnou dávkou apomorfínu, klasického agonistu dopamínu (Melis a kol., 1990) a d (CH2) 5Tyr (Me) -Orn8-vazotocínu, ktorý blokuje oxytocín (Argiolas et al., 1987a), ale tiež uľahčujúci účinok apomorfínu na správanie mužov v kopulácii (Argiolas a kol., 1987b) u sexuálne silných samcov potkanov, počas ktorých sa pri erekcii penisu kopula nastať. D (CH2) 5Tyr (Me) -Orn8-vazotocín je tiež mimoriadne účinný pri znižovaní nekontaktnej erekcie u pohlavne silných samcov potkanov, keď sa podáva v nanogramových množstvách do laterálnych komôr, ale nie do PVN (Melis et al., 1999a).
Po druhé, mezolimbické dopaminergné neuróny hrajú kľúčovú úlohu v motivačných a odmeňujúcich vlastnostiach prirodzených posilňujúcich stimulov, ako je jedlo, voda a sexuálna aktivita (Fibiger a Phillips, 1988; Wise a Rompre, 1989; Everitt, 1990). Predovšetkým sa predpokladá, že dopamín uvoľňovaný z týchto neurónov sprostredkováva transpozíciu motivačných aspektov prirodzených stimulov do cieľovo zameraného správania, napríklad v prípade sexuálnej aktivity, hľadania sexuálneho partnera a pohlavného styku za účelom dosiahnutia odmeny a uspokojenia (Goto a Grace, 2005). V súlade s tým sa extracelulárna koncentrácia dopamínu v dialyzáte z nucleus accumbens sexuálne potentných samcov potkanov zvyšuje počas expozície neprístupnej ovariektomizovanej receptívnej samici potkana s estrogénom + progesterónom a toto zvýšenie bolo ešte vyššie, keď sa samcovi potkana umožnilo kopulovať s receptívnou samicou (Pfaus a Everitt, 1995).
Po tretie, súčasné výsledky podporujú hypotézu, že neurálny obvod spája paraventrikulárne jadro s ventrálnou tegmentálnou oblasťou priamo alebo nepriamo (cez ventrálnu subiculum a / alebo posteromediálne kortikálne jadro amygdaly) a jadro accumbens a odtiaľ cez neznámu opäť späť do paraventrikulárneho jadra na kontrolu aktivity oxytocinergných neurónov vyčnievajúcich do miechy sprostredkovávajúcich erekciu penisu a oxytocinergných neurónov vyčnievajúcich do ventrálnej tegmentálnej oblasti, ventrálnej subiculum a posteromediálneho kortikálneho jadra amygdaly, modulujúc týmto spôsobom aktivity mezolimbických dopaminergných neurónov (obrázok 4). Tento komplexný nervový obvod môže zohrávať úlohu pri integrácii nervových aktivít, ktoré sa podieľajú na kontrole konzumácie (erektilnej ejakulácie) a predvídavých (motivačných a odmeňovacích) aspektoch mužského sexuálneho správania vo fyziologických súvislostiach. Samozrejme, extracelulárny dopamín sa zvyšuje v nucleus accumbens (Pfaus a Everitt, 1995) a v paraventrikulárnom jadre sexuálne silných samcov potkanov počas expozície nedosiahnuteľnej recepčnej samičkej kryse, ak sa vyskytujú nekontaktné erekcie, a ešte viac, keď je povolená kopulácia, napr. keď sa v penisu vyskytujú penisy (Melis a kol., 2003). Takže aj keď sú potrebné ďalšie štúdie na objasnenie úlohy endogénneho oxytocínu vo ventrálnej tegmentálnej oblasti, ventrálnej subiculum a amygdálii počas nekontaktnej erekcie a sexuálneho správania, môže byť potom rozumné predpokladať, že tento hypotetický neurálny okruh, zatiaľ čo prispieva k (Everitt, 1990, Pfaus a Everitt, 1995), čo môže viesť aj k zvýšeniu kvality života a sexuálneho správania. V tomto ohľade je pozoruhodné, že mezolimbický dopaminergný systém aktivovaný oxytocínom vstrekovaným do ventrálnej tegmentálnej oblasti je ten istý, aktivovaný drogami, ako sú opiáty, kanabinoidy, amfetamín, kokaín a alkohol (Tanda a kol., 1997) že oxytocín bol schopný redukovať toleranciu a závislosť od kokaínu, morfínu, alkoholu a kanabinoidov (Kovacs a kol., 1998, Cui a kol., 2001). Na záver sa zdá, že oxytocín uvoľňovaný nielen vo ventrálnej tegmentálnej oblasti, ale aj vo ventrálnom subiculu a posteromedálnom kortikálnom jadre amygády, môže aktivovať mezolimbické dopaminergné neuróny, ktoré sa môžu podieľať na apetitívnych a odmeňujúcich účinkoch sexuálnej aktivity , Aktivácia mezolimbických dopamínergných neurónov môže byť priama prostredníctvom oxytocinergných receptorov v bunkových telách mezolimbických dopaminergných neurónov alebo nepriamo prostredníctvom aktivácie neurotransmisie kyseliny glutámovej vo ventrálnej tegmentálnej oblasti.
Dopamín uvoľnený v jadrovej vrstve nucleus accumbens zase moduluje aktivitu inertno-hypotalamických dopaminergných neurónov v paraventrikulárnom jadre, čo spôsobuje buď erekciu penisu (prostredníctvom aktivácie oxytocinergných neurónov vyčnievajúcich do miechy), alebo sexuálnu motiváciu a odmenu (prostredníctvom aktivácie oxytocinergných neuróny vyčnievajúce do ventrálnej tegmentálnej oblasti, ventrálnej čiastočky alebo posteromediálneho kortikálneho jadra amygády). Pretože dopamín je tiež uvoľňovaný v jadrovej štruktúre a v paraventrikulárnom jadre, keď sa erekcia penisu vyskytuje vo fyziologických kontextoch (napr. Nekontaktná erekcia a kopulácia) (Succu et al., 2007, Melis et al., 2003, 2007). pravdepodobne, že centrálne oxytocinergné neuróny sa podieľajú na nervových obvodoch sprostredkujúcich interakciu medzi mezolimbickým a incerto-hypotalamickým dopaminergným systémom. Tieto neurálne okruhy môžu zohrávať úlohu nielen vo fajčiarskej fáze sexuálneho správania (napr. Pri erekcii penisu a kopulácii), ale aj v sexuálnej motivácii, pohlavnom vzrušení a sexuálnej odmene.
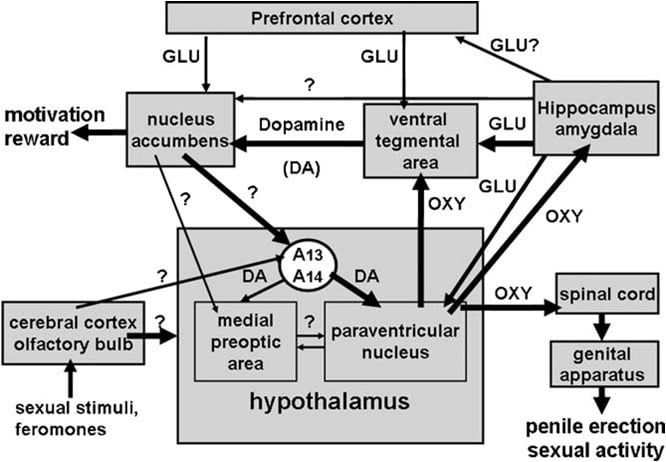
Schematické znázornenie hypotetického neurálneho obvodu zahŕňajúceho oxytocín ovplyvňujúci sexuálnu motiváciu, odmeňovanie a sexuálny výkon, ako naznačujú výsledky tejto kapitoly a predchádzajúcich správ. Oxytocinergné neuróny pochádzajúce z paraventrikulárneho jadra a vyčnievajúce do miechy, keď sú aktivované napríklad dopamínom a kyselinou glutámovou (ale aj inými neurotransmitermi a/alebo neuropeptidmi), uľahčujú erekciu penisu a sexuálny výkon aktiváciou oxytocinergných neurónov vyčnievajúcich do miechy. Dopamín a kyselina glutámová (ale aj neurotransmitery a neuropeptidy) v paraventrikulárnom jadre tiež aktivujú oxytocinergné neuróny vyčnievajúce do ventrálnej tegmentálnej oblasti, čím aktivujú mezolimbické dopaminergné neuróny vyčnievajúce do nucleus accumbens, čím modulujú sexuálnu motiváciu a odmenu. Dopamín uvoľnený v nucleus accumbens (NAs) následne aktivuje doteraz neznáme nervové dráhy, ktoré zvyšujú aktivitu incerto-hypotalamických dopaminergných neurónov (pochádzajúcich zo skupín A13-A14 Dahlstromových a Fuxeových neurónov), pričom pôsobia okrem iného na oxytocinergné neuróny, vrátane tých, ktoré vyčnievajú do miechy, čo vedie k erekcii penisu. Tento okruh môže byť aktivovaný aj oxytocínom injekčne podaným nielen do kaudálnej ventrálnej tegmentálnej oblasti, ale aj do ventrálneho subikula a do amygdaly, ktoré tiež dostávajú oxytocinergnú inerváciu z paraventrikulárneho jadra, pravdepodobne prostredníctvom priameho alebo nepriameho glutamatergného eferentu do ventrálnej tegmentálnej oblasti, čo vedie k modulácii sexuálnej motivácie aj erekcie penisu. Nakoniec, vyššie uvedené obvody môžu byť aktivované aj sexuálnymi stimulmi a feromónmi, pretože extracelulárny dopamín a kyselina glutámová sa zvyšujú v paraventrikulárnom jadre (a v mediálnej preoptickej oblasti) počas bezkontaktných erekcií a kopulácie sprostredkovaných feromónmi (príslušné odkazy nájdete v zozname referencií).
Poďakovanie Táto práca bola čiastočne podporená grantom talianskeho ministerstva univerzity a výskumu AA a MRM
Referencie
Andersson, KE, 2001. Farmakológia erekcie penisu. Pharmacol. Rev. 53, 417-450. Argiolas, A., 1994. Oxid dusnatý je hlavným sprostredkovateľom erekcie penisu. Neurofarmakológia 33, 1339-1344. Argiolas, A., 1999. Neuropeptidy a sexuálne správanie. Neurosci. Biobehav. Rev. 23, 1127-1142. Argiolas, A., Gessa, GL, 1991. Ústredné funkcie oxytocínu. Neurosci. Biobehav. Rev. 15, 217-231. Argiolas, A., Melis, MR, 1995. Neuromodulácia erekcie penisu: prehľad úlohy neurotransmiterov a neuropeptidov. Prog. Neurobiol. 47, 235-255. Argiolas, A., Melis, MR, 2004. Úloha oxytocínu a paraventrikulárneho jadra v sexuálnom správaní samcov cicavcov. Physiol. Behave. 83, 309-317. Argiolas, A., Melis, MR, 2005. Centrálna kontrola erekcie penisu: úloha paraventrikulárneho jadra hypotalamu. Prog. Neurobiol. 76, 1-21. Argiolas, A., Collu, M., Gessa, GL, Melis, MR, Serra, G., 1988. Antagonista oxytocínu d (CH2) 5Tyr (Me) -Orn8-vazotocín antagonizuje správanie mužov na kopuláciu u potkanov. E. J. Pharmacol. 149, 389-392. Argiolas, A., Collu, M., D'Aquila, P., Gessa, GL, Melis, MR, Serra, G., 1989. Apomorfínová stimulácia správania mužského kopulácie sa zabráni antagonistom oxytocínu d (CH2) 5Tyr (Me) -Orn8-vazotocín u potkanov. Pharmacol. Biochem. Behave. 33, 81-83. Argiolas, A., Melis, MR, Gessa, GL, 1985. Intraventrikulárny oxytocín indukuje zívanie a erekciu penisu u potkanov. E. J. Pharmacol. 117, 395-396. Argiolas, A., Melis, MR, Gessa, GL, 1986. Oxytocín: mimoriadne silný induktor erekcie penisu a zívanie samcov potkanov. E. J. Pharmacol. 130, 265-272. Argiolas, A., Melis, MR, Mauri, A., Gessa, GL, 1987a. Paraventrikulárne poškodenie jadra zabraňuje zívnutiu a erekcii penisu indukovanej apomorfínom a oxytocínom, ale nie prostredníctvom ACTH u potkanov. Brain Res. 421, 349-352. Argiolas, A., Melis, MR, Vargiu, L., Mauri, A., Gessa, GL, 1987b. d (CH2) 5Tyr (Me) -Orn8-vazotocín, silný antagonista oxytocínu, antagonizuje erekciu penisu a zívanie indukované oxytocínom a apomorfínom, ale nie ACTH 1-24. E. J. Pharmacol. 134, 221-224. Argiolas, A., Melis, MR, Stancampiano, R., Gessa, GL, 1990. Konotoxín zabraňuje apomorfínu a oxytocínu indukovanému erekcii penisu a zívanie samcov potkanov. Pharmacol. Biochem. Behave. 37, 253-257. Arletti, R., Bertolini, A., 1985. Oxytocín stimuluje správanie lordózy u samíc potkanov. Neuropeptidy 6, 247-255. Arletti, R., Bazzani, C., Castelli, M., Bertolini, A., 1985. Oxytocín zlepšuje výkon kopulácie u potkanov. Horm. Behave. 19, 14-20. Arletti, R., Benelli, A., Bertolini, A., 1990. Sexuálne správanie starnúcich samcov potkanov stimuluje oxytocín. E. J. Pharmacol. 179, 377-382. Arletti, R., Calzà, L., Giardino, L., Benelli, A., Cavazzutti, E., Bertolini, A., 1997. Sexuálna impotencia je spojená so zníženou tvorbou oxytocínu a so zvýšenou produkciou opioidných peptidov v paraventrikulárnom jadre hypotalamu. Neurosci. Letí. 233, 65-68. Bancila, M., Giuliano, F., Rampin, O., Mailly, P., Brisorgueil, MJ, Clas, A., Verge, D., 2002. Dôkazy na priamu projekciu paraventrikulárneho jadra hypotalamu na predpokladané serotonínergné neuróny jadra paragigantocelulárneho, ktoré sa podieľajú na kontrole erekcie u potkanov. E. J. Neurosci. 16, 1240-1249. Burnett, AL, Lowenstein, CJ, Bredt, DS, Chang, TSK, Snyder, SH, 1992. Oxid dusnatý: fyziologický mediátor erekcie penisu. Veda 257, 401-403. Baskerville, TA, Douglas, AJ, 2008. Interakcia medzi dopamínom a oxytocínom pri kontrole sexuálneho správania. Prog. Brain Res. 170, 277-289. Baskerville, TA, Allard, J., Wayman, C., Douglas, AJ, 2009. Interakcia medzi dopamínom a oxytocínom v erekcii penisu. E. J. Neurosci. 30, 2151-2164. Benelli, A., Bertolini, A., Poggioli, R., Cavazzutti, E., Calzà, L., Giardino, L., Arletti, R., 1995. Oxid dusnatý sa podieľa na mužskom sexuálnom správaní potkanov. E. J. Pharmacol. 294, 505-510. Bernabè, J., Rampin, O., Sachs, BD, Giuliano, F., 1999. Intrakavernózny tlak počas erekcie u potkanov: integračný prístup založený na telemetrickom nahrávaní. Am. J. Physiol. 276, R441-R449. Bitner, RS, Nikkel, AL, Otte, S., Martino, B., Barlow, EH, Bhatia, P., Stewart, AO, Brioni, JD, Decker, MW, Moreland, RB, 2006. Dopamínová signalizácia receptora D4 v kryopatogénnom hypotalamickom jadre: dôkaz o prirodzenej väzbe zahŕňajúcej okamžitú skorú indukciu génu a fosforyláciu proteínkinázy aktivovanú mitogénom. Neurofarmakológia 50, 521-531. Brioni, JD, Moreland, RB, Cowart, M., Hsieh, GC, Stewart, AO, Hedlund, P., Donnelly-Roberts, DL, Nakane M., Lynch 3rd., J. Kolasa, T. Polakowski , JS, Osinski, MA, Marsh, K., Andersson, KE, Sullivan, JP, 2004. Aktivácia dopamínových D4 receptorov ABT-724 indukuje erekciu penisu u potkanov. Proc. Natl. Acad. Sci. Spojené štáty americké 101, 6758-6763. Buijs, RM, 1978. Intra- a extra-hypotalamické vazopresínové a oxytocínové cesty u potkanov. Cell Tissue Res. 192, 423-435. Buijs, RM, Geffard, M., Pool, CW, Hoorneman, EMD, 1984. Dopaminergná inervácia superoptického a paraventrikulárneho jadra. Ľahká a elektrónová mikroskopická štúdia. Brain Res. 323, 65-72. Caldwell, JD, Prange, AJ, Pedersen, CA, 1986. Oxytocín uľahčuje sexuálnu receptivitu potkanov ošetrovaných estrogénom. Neuropeptidy 7, 175-189. Cameron, JL, Pomerantz, SM, Layden, LM, Amico, JA, 1992. Dopaminergná stimulácia koncentrácií oxytocínu v plazme samíc a samíc opíc apomorfínom a agonistom receptora D2. J. Clin. Endocrinol. METABO. 75, 855-860. Canteras, NS, Simerly, RB, Swanson, LW, 1995. Organizácia projekcií z mediálneho jadra amygdaly: štúdia PHAL u potkanov. J. Comp. Neurol. 360, 213-245. Carmichael, MS, Humbert, R., Dixen, J., Palmisano, G., Greeleaf, W., Davidson, JM, 1987. Plazmatický oxytocín zvyšuje ľudskú sexuálnu odpoveď. J. Clin. Endocrinol. METABO. 64, 27-31. Carter, CS, 1992. Oxytocín a sexuálne správanie. Neurosci. Biobehav. Rev. 16, 131-144. Carter, CS, Lederhendler, II., Kirkpatrick, B., 1997. Interaktívna neurobiológia pridruženia, Annals of the New York Academy of Sciences, zv. 807. New York Academy of Sciences, New York. Castelli, MP, Piras, AP, Melis, T., Succu, S., Sanna, F., Melis, MR, Collu, S., Ennas, MG, Diaz, G., Mackie, K., Argiolas, A. , 2007. Kanabinoidné receptory CB1 v paraventrikulárnom jadre a centrálna kontrola erekcie penisu: imunocytochémia, autorádiografia a behaviorálne štúdie. Neuroscience 147, 197-206. Chen, KK, Chang, LS, 2003. Účinok agonistov receptora excitačných aminokyselín na erekciu penisu po podaní do paraventrikulárneho jadra hypotalamu u potkanov. J. Urol. 62, 575-580. Chen, KK, Chan, JYH, Chang, LS, Chen, MT, Chang, SHH, 1992. Vyvolanie erekcie penisu po aktivácii tvorby hipokampu u potkanov. Neurosci. Letí. 141, 218-222. Chen, KK, Chan, JYH, Chang, LS, 1999. Dopaminergná neurotransmisia v paraventrikulárnom jadre hypotalamu v centrálnej regulácii erekcie penisu u potkanov. J. Urol. 162, 237-242. Collins, GT, Truccone, A., Haji-Abdi, F., Newman, AH, Grundt, P., Rice, KC, Husbands, SM, Greedy, BM, Enguehard-Gueiffer, , J., Wang, S., Katz, JL, Grandy, DK, Sunahara, RK, Woods, JH, 2009. Pro-erektilné účinky agonistov podobných dopamínu D2 sú sprostredkované receptorom D3 u potkanov a myší. J. Pharmacol. Exp. Ther. 329, 210-217. Coolen, LM, Allard, J., Truitt, WA, McKenna, KE, 2004. Centrálna regulácia ejakulácie. Physiol. Behave. 83, 203-215. Cui, SS, Bowen, RC, Gu, GB, Hannesson, BK, Yu, PH, Zhang, X., 2001. Prevencia syndrómu abstinencie od kanabinoidu lítiom: zapojenie oxytocinergnej neurónovej aktivácie. J. Neurosci. 21, 9867-9876. Dahlstrom, A., Fuxe, K., 1964. Dôkaz o existencii neurónov obsahujúcich monoamín v centrálnej nervovej sústave. I. Demonštrácia monoamínov v bunkových telách neurónov mozgového kmeňa. Acta Physiol. Scanda. 62 (Suppl. 232), 1-54. Depoortère, R., Bardin, L., Rodrigues, M., Abrial, E., Aliaga, M., Newman-Tancredi, A., 2009. Erekcia penisu a zívanie indukované agonistami dopamínového receptora podobného D2u u potkanov: vplyv kmeňa a prínosu dopamínu D2, ale nie receptorov D3 a D4. Behave. Pharmacol. 20, 303-311. Domes, G., Heinrichs, M., Buchel, C., Braus, DF, Herpertz, SC, 2007. Oxytocín zmierňuje amygdálne reakcie na emocionálne tváre bez ohľadu na valenciu. Biol. Psychiatria 62, 11871190. Dominguez, J., Riolo, JV, Xu, Z., Hull, ME, 2001. Regulácia prostredníctvom mediálnej amygády kopulácie a mediálneho predoptického uvoľňovania dopamínu. J. Neurosci. 21, 349-355. Donaldson, ZR, Young, LJ, 2009. Oxytocín, vazopresín a neurogenetika spoločenského života. Veda 322, 900-904. Eaton, RG, Markowski, VF, Lumley, LA, Thompson, JT, Moses, J., Hull, EM, 1991. D2 receptory v paraventrikulárnom jadre regulujú genitálne odpovede a kopuláciu u samcov potkanov. Pharmacol. Biochem. Behave. 39, 177-181. Ebner, K., Bosch, OJ, Krömer, SA, Singewald, N., Neumann, ID, 2005. Uvoľňovanie oxytocínu v strednej amygade u potkanov moduluje chovanie pri stresovej manipulácii a uvoľňovanie excitačných aminokyselín. Neuropsychofarmakológia 30, 223-230. Enguehard-Gueiffier, C., Hübner, H., El Hakmaoui, A., Allouchi, H., Gmeiner, P., Argiolas, A., Melis, MR, Gueiffier, A., 2006. 2 - [(4-Fenylpiperazín-1-yl) metyl] imidazo (di) azíny ako selektívne ligandy D4. Indukcia erekcie penisu pomocou 2- [4- (2-metoxyfenyl) piperazín-1-ylmetyl] imidazo [1,2-a] pyridín (PIP3EA), silný a selektívny agonista D4. J. Med. Chem. 49, 3938-3947. Everitt, BJ, 1990. Sexuálna motivácia: nervová a behaviorálna analýza mechanizmov, ktoré sú základom apretívnych a kopulačných odpovedí mužských potkanov. Neurosci. Biobehav. Rev. 14, 217-232. Fibiger, HC, Phillips, AG, 1988. Mezokortikolimbický dopamínový systém a odmena. Ann. N. Y. Acad. Sci. 5, 206-215. Francúzština, SJ, Totterdell, S., 2003. Jednotlivé jadrové accumbens-projekčné neuróny dostávajú bazolaterálnu amyglálu a ventrálne subkutánne aferenty u potkanov. Neuroscience 119, 19-31. 954 MR Melis, A. Argiolas / Neuroscience a Biobehavioral Recenzie 35 (2011) 939-955 Freund-Mercier, MJ, Richard, P., 1981. Excitačné účinky intraventrikulárnych injekcií oxytocínu na reflex výstreku mlieka u potkanov. Neurosci. Letí. 23, 193-198. Freund-Mercier, MJ, Richard, P., 1984. Elektrofyziologické dôkazy na uľahčenie kontroly oxytocínových neurónov oxytocínom počas dojčenia potkanov. J. Physiol. (Lond.) 352, 447-466. Freund-Mercier, MJ, Stoeckel, ME, 1995. Somatodendritické autoreceptory na oxytocínových neurónoch. In: Ivell, R., Russel, JA (Eds.), Oxytocín, bunkové a molekulárne prístupy v medicíne a výskume. Prísl. Exp. Med. Biol., 365. Plenum Press, New York a Londýn, str. 185-194. Freund-Mercier, MJ, Stoeckel, ME, Palacios, JM, Pazos, JM, Richard, PH, Porte, A., 1987. Farmakologické charakteristiky a anatomická distribúcia 3H oxytocínových väzbových miest v mozgu potkana Wistar študovaných autorádiografiou. Neuroscience 20, 599-614. Giuliano, F., Rampin, O., 2000. Centrálna kontrola erekcie penisu. Neurosci. Biobehav. Rev. 24, 517-533. Giuliano, F., Allard, J., 2001. Dopamín a sexuálne funkcie. Int. J. Impotencia Res. 13 (Suppl. 3), 18-28. Giuliano, F., Rampin, O., 2004. Neurálna kontrola erekcie. Physiol. Behave. 83, 189-201. Giuliano, F., Bernabé, J., McKenna, KE, Longueville, F., Rampin, O., 2001. Spinocelulárny efekt oxytocínu u anestetizovaných potkanov. Am J. Physiol. Regul. Integ. Comp. Physiol. 280, R1870-R1877. Prejsť, Y., Grace, AA, 2005. Dopaminergná modulácia limbického a kortikálneho pôsobenia jadra accumbens v cieľovom správaní. Nat. Neurosci. 8, 805-812. Hawthorn, J., Ang, VT, Jenkins, JS, 1985. Účinky lézií v hypotalamických paraventrikulárnych, supraoptických a suprachiasmatických jadrách na vazopresín a oxytocín v mozgu potkana a mieche. Brain Res. 346, 51-57. Heier, RF, Dolak, LA, Duncan, JN, Hyslop, DK, Lipton, MF, Martin, LJ, Mauragis, MA, Piercey, MF, Nichols, NF, Schreur, PJ, Smith, MW, Moon, 1997. Syntéza a biologické aktivity (R) -5,6-dihydro-N, N-dimetyl-4H-imidazo [4,5,1-ij] chinolín-5-amín) a jeho metabolitov. J. Med. Chem. 40, 639-646. Hsieh, GC, Hollingsworth, PR, Martino, B., Chang, R., Terranova, MA, O'Neill, AB, Lynch, JJ, Moreland, RB, Donnelly-Roberts, DL, Kolasa, T., Mikusa, JP McVey, JM, Marsh, KC, Sullivan, JP, Brioni, JD, 2004. Centrálne mechanizmy regulujúce erekciu penisu u potkanov s vedomím: dopamínergné systémy súvisiace s procretilným účinkom apomorfínu. J. Pharmacol. Exp. Ther. 308, 330-338. Huang, PL, Dawson, TM, Bredt, DS, Snyder, SH, Fishman, MC, 1993. Cielené prerušenie neuronálneho génu syntázy oxidu dusnatého. Bunka 75, 1273-1286. Huber, D., Veinante, P., Stoop, R., 2005. Vasopresín a oxytocín vyvolávajú odlišné neuronálne populácie v centrálnej amygade. Veda 308, 245-248. Hull, EM, Warner, RK, Bazzett, TJ, Eaton, RC, Thompson, JT, 1989. Pomer D2 / D1 v mediálnej preoptickej oblasti ovplyvňuje kopuláciu samcov potkanov. J. Pharmacol. Exp. Ther. 251, 422-427. Hull, EM, Du, J., Lorrain, DS, Matuszewich, L., 1995. Extracelulárny dopamín v mediálnej preoptickej oblasti: dôsledky sexuálnej motivácie a hormonálnej kontroly kopulácie. J. Neurosci. 15, 7465-7471. Hull, EM, Meisel, RL, Sachs, BD, 2002. Mužské sexuálne správanie. In: Pfaff, DW, Arnold, AP, Etgen, AM, Fahrbach, SE, Rubin, RT (Eds.), Hormóny, mozog a správanie. Academic Press, New York, str. 3-137. Hurlemann, R., Patin, A., Onur, OA, Cohen, MX, Baumgartner, T., Metzler S., Dziobek I., Gallinat J., Wagner M., Maier W. Kendrick, KM, 2010. Oxytocín zvyšuje závislosť od amygdaly, sociálne posilnené učenie a emocionálnu empatiu u ľudí. J. Neurosci. 30, 4999-5007. Ivell, R., Russel, JA, 1995. Oxytocín: bunkové a molekulárne prístupy v medicíne a výskume. Pokroky v experimentálnej medicíne a biológii, zv. 395. Plenum Press, New York. Kelley, AE, Domesick, VB, 1982. Distribúcia projekcie z hipokampálnej formácie do nucleus accumbens u potkanov: štúdie anterogradnej a retrográdnej chrenovej peroxidázy. Neuroscience 7, 2321-2335. Kimura, Y., Naitou, Y., Wanibuchi, F., Yamaguchi, T., 2008. Aktivácia 5-HT (2C) receptora je bežným mechanizmom na proektilné účinky apomorfínu, oxytocínu a melanotanu II u potkanov. E. J. Pharmacol. 589, 157-162. Kondo, Y., Sachs, BD, Sakuma, Y., 1998. Význam mediálnej amygdaly pri erekcii penisu potkana vyvolanej vzdialenými stimulmi z estrických žien. Behave. Brain Res. 91, 215-222. Kovacs, GL, Sarnyai, Z., Szabo, G., 1998. Oxytocín a závislosť: prehľad. Psychoneuroendokrinológia 23, 945-962. Lee, HJ, Macbeth, AH, Pagani, JH, Scott Young 3rd, W., 2009. Oxytocín: veľký sprostredkovateľ života. Prog. Neurobiol. 88, 127-151. Lindvall, O., Bjorklund, A., Skagerberg, G., 1984. Selektívne istochemické preukázanie terminálnych systémov dopamínu v potkanoch di- a telencephalon: nový dôkaz pre dopaminergnú inerváciu hypotalamických neurosecretorových jadier. Brain Res. 306, 19-30. Liu, YC, Salamone, JD, Sachs, BD, 1997. Zhoršená sexuálna odpoveď po poškodeniach paraventrikulárneho jadra hypotalamu u samcov potkanov. Behave. Neurosci. 111, 1361-1367. Löber, S., Tschammer, N., Hübner, H., Melis, MR, Argiolas, A., Gmeiner, P., 2009. Azulenová kostra ako nový bioizoster: návrh silných dopamínových D4 receptorových ligandov indukujúcich erekciu penisu. Chem. Med. Chem. 4, 325-328. McCleskey, EW, Fox, AP, Feldman, DH, Cruz, LJ, Olivera, BM, Tsien, RW, Yoshikami, D., 1987. Konotoxín: priama a pretrvávajúca blokáda špecifických typov kalciových kanálov v neurónoch, ale nie v svaloch. Prot. Nat. Acad. Sci. Spojené štáty americké 84, 4327-4331. McKenna, KE, 2000. Niektoré návrhy týkajúce sa organizácie kontroly centrálnej nervovej sústavy pri erekcii penisu. Neurosci. Biobehav. Rev. 24, 535-540. Marson, L., McKenna, KE, 1992. Úloha 5-hydroxytryptamínu v zostupnej inhibícii spinálnych sexuálnych reflexov. Exp. Brain Res. 88, 313-318. Marson, L., McKenna, KE, 1996. Skupiny buniek CNS, ktoré sa podieľajú na kontrole svalov ischiocavernosus a bulbospongiosus: transneuronálna sledovacia štúdia používajúca vírus pseudorabies. J. Comp. Neurol. 374, 161-179. Meisel, RL, Sachs, BD, 1994. Fyziológia mužského sexuálneho správania. In: Knobil, E., Neil, J. (Eds.), The Physiology of Reproduction, vol. 2, druhé vydanie. Raven Press, New York, str. 3-96. Melin, P., Kihlstrom, JE, 1963. Vplyv oxytocínu na sexuálne správanie u samcov králikov. Endokrinológia 73, 433-435. Melis, MR, Argiolas, A., 1995a. Dopamín a sexuálne správanie. Neurosci. Biobehav. Rev. 19, 19-38. Melis, MR, Argiolas, A., 1995b. Dojiari oxidu dusnatého indukujú erekciu penisu a zívanie pri injekcii do centrálneho nervového systému samcov potkanov. E. J. Pharmacol. 294, 1-9. Melis, MR, Argiolas, A., 2003. Centrálna oxytocinergná neurotransmisia: liečebný cieľ pre terapiu psykogénnej erektilnej dysfunkcie. Akt. Drogové ciele 4, 55-66. Melis, MR, Argiolas, A., Gessa, GL, 1986. Očkovanie vyvolané oxytocínom a erekcia penisu: miesto pôsobenia v mozgu. Brain Res. 398, 259-265. Melis, MR, Argiolas, A., Gessa, GL, 1987. Apomorfínom vyvolané zívanie a erekcia penisu: miesto pôsobenia v mozgu. Brain Res. 415, 98-104. Melis, MR, Argiolas, A., Gessa, GL, 1989a. Apomorfín zvyšuje hladiny oxytocínu v plazme u potkanov. Neurosci. Letí. 98, 351-355. Melis, MR, Argiolas, A., Gessa, GL, 1989b. Dôkaz, že apomorfín indukuje erekciu penisu a zívanie uvoľňovaním oxytocínu v centrálnom nervovom systéme. E. J. Phamacol. 164, 565-570. Melis, MR, Argiolas, A., Stancampiano, R., Gessa, GL, 1990. Účinok apomorfínu na koncentrácie oxytocínu v rôznych oblastiach mozgu a plazma samcov potkanov. E. J. Pharmacol. 182, 101-107. Melis, MR, Mauri, A., Argiolas, A., 1994a. Apomorfínové a oxytocínom vyvolané erekcie penisu a zívanie u intaktných a kastrovaných samcov potkanov: účinok pohlavných steroidov. Neuroendokrinológia 59, 349-354. Melis, MR, Stancampiano, R., Argiolas, A., 1994b. Budovanie penisu a zívanie indukované paraventrikulárnymi injekciami NMDA sú sprostredkované oxytocínom. Pharmacol. Biochem. Behave. 48, 203-207. Melis, MR, Stancampiano, R., Argiolas, A., 1994c. Prevencia prostredníctvom NG-nitro-l-arginínu metylesteru erekcie penisu indukovanej apomorfínom a oxytocínom a zívanie: miesto pôsobenia v mozgu. Pharmacol. Biochem. Behave. 48, 799-804. Melis, MR, Succu, S., Argiolas, A., 1996. Agonisty dopamínu zvyšujú produkciu oxidu dusnatého v paraventrikulárnom jadre hypotalamu: korelácia s erekciou penisu a zívaním. E. J. Neurosci. 8, 2056-2063. Melis, MR, Succu, S., Iannucci, U., Argiolas, A., 1997. Oxytocín zvyšuje produkciu oxidu dusnatého v paraventrikulárnom jadre hypotalamu: korelácia s erekciou penisu a zívaním. Reg. Peptidy 69, 105-112. Melis, MR, Succu, S., Mauri, A., Argiolas, A., 1998. Produkcia oxidu dusnatého sa zvyšuje v paraventrikulárnom jadre hypotalamu samcov potkanov počas erekcie a kopulácie bez kontaktu s penisom. E. J. Neurosci. 10, 1968-1974. Melis, MR, Spano, MS, Succu, S., Argiolas, A., 1999a. Antagonista oxytocínu d (CH2) 5Tyr (Me) 2-Orn8-vazotocín znižuje erekciu penisu bez kontaktu u samcov potkanov. Neurosci. Letí. 265, 171-174. Melis, MR, Succu, S., Spano, MS, Argiolas, A., 1999b. Morfín injikovaný do paraventrikulárneho jadra hypotalamu zabraňuje bezkontaktnej erekcii a narúša kopuláciu: účasť oxidu dusnatého. E. J. Neurosci. 11, 1857-1864. Melis, MR, Spano, MS, Succu, S., Argiolas, A., 2000. Účinok antagonistov excitačných aminokyselín, dopamínu a oxytocínu na nekontaktné erekcie penisu a produkciu paraventrikulárneho oxidu dusnatého u samcov potkanov. Behave. Neurosci. 114, 849-857. Melis, MR, Succu, S., Mascia, MS, Cortis, L., Argiolas, A., 2003. Extracelulárny dopamín sa zvyšuje v paraventrikulárnom jadre samcov potkanov počas sexuálnej aktivity. E. J. Neurosci. 17, 1266-1272. Melis, MR, Succu, S., Mascia, MS, Argiolas, A., 2004a. Antagonizmus kanabinoidných receptorov CB1 v paraventrikulárnom jadre samčích potkanov vyvoláva erekciu penisu. Neurosci. Letí. 359, 17-20. Melis, MR, Succu, S., Mascia, MS, Cortis, L., Argiolas, A., 2004b. Extracelulárne excitačné aminokyseliny sa zvyšujú v paraventrikulárnom jadre samcov potkanov počas sexuálnej aktivity: hlavná úloha NMDA receptorov v erektilnej funkcii. E. J. Neurosci. 19, 2569-2575. Melis, MR, Succu, S., Mascia, MS, Argiolas, A., 2005. PD-168,077, agonista selektívneho dopamínového D4 receptora, indukuje erekciu penisu po injekcii do paraventrikulárneho jadra samcov potkanov. Neurosci. Letí. 379, 59-62. Melis, MR, Succu, S., Mascia, MS, Sanna, F., Melis, T., Succu, S., Castelli, MP, Argiolas, A., 2006a. SR 141716A-indukovaná erekcia penisu u samcov potkanov: účasť paraventrikulárnej kyseliny glutámovej a oxidu dusnatého. Neurofarmakológia 50, 219-228. Melis, MR, Succu, S., Sanna F., Mascia, MS, Melis, T., Enguehard-Gueiffier, C., Hubner H., Gmenier P., Gueiffier A., Argiolas A., 2006b. PIP3EA a PD168077, dva selektívne agonisty receptora dopamínu D4, indukujú erekciu penisu u samcov potkanov: miesto a mechanizmus účinku v mozgu. E. J. Neurosci. 24, 2021-2030. Melis, MR, Melis, T., Cocco, C., Succu, S., Sanna, F., Pillolla, G., Boi, A., Ferri, GL, Argiolas, A., 2007. Oxytocín injikovaný do ventrálnej tegmentálnej oblasti indukuje erekciu penisu a zvyšuje extracelulárny dopamín v nucleus accumbens MR Melis, A. Argiolas / Neuroscience a Biobehavioral Reviews 35 (2011) 939-955 955 a paraventrikulárne jadro hypotalamu samcov potkanov. E. J. Neurosci. 26, 1026-1035. Melis, MR, Sanna, F., Succu, S., Zarone, P., Boi, A., Argiolas, A., 2009a. Úloha oxytocínu v očakávanej a konzumačnej fáze sexuálneho správania samcov potkanov. In: Jastrow, H., Feuerbach, D. (Eds.), Príručka oxytocínového výskumu: Syntéza, skladovanie a uvoľňovanie, akcie a liekové formy. Nova vydavatelia Inc, New York, USA, str. 109-125. Melis, MR, Succu, S., Sanna, F., Boi, A., Argiolas, A., 2009b. Oxytocín injikovaný do ventrálnej subiculum alebo posteromediálneho kortikálneho jadra amygdaly indukuje erekciu penisu a zvyšuje extracelulárny dopamín v nucleus accumbens samčích potkanov. E. J. Neurosci. 30, 1349-1357. Melis, MR, Succu, S., Cocco, C., Caboni, E., Sanna, F., Boi, A., Ferri, GL, Argiolas, A., 2010. Oxytocín indukuje erekciu penisu pri vstreknutí do ventrálnej čiastočky: úloha oxidu dusnatého a kyseliny glutámovej. Neurofarmakológia 58, 1153-1160. Moreland, RB, Nakane, M., Donnelly-Roberts, DL, Miller, LN, Chang, R., Uchic, ME, Terranova, MA, Gubbins, Masters, JN, Brioni, JD, 2004. Porovnávacia farmakológia ľudských buniek dopamínového D (2) podobného receptoru spojených s tokom vápnika cez Galpha (qo5). Biochem. Pharmacol. 68, 761-772. Moos, F., Freund-Mercier, MJ, Guerne, Y., Guerne, JM, Stoeckel, ME, Richard, P., 1984. Uvoľňovanie oxytocínu a vazopresínu magnetickými jadrami in vitro: špecifický podporný účinok oxytocínu na jeho vlastné uvoľňovanie. J. Endocrinol. 102, 63-72. Murphy, MR, Seckl, JR, Burton, S., Checkley, SA, Lightman, SL, 1987. Zmeny sekrécie oxytocínu a vazopresínu počas sexuálnej aktivity u mužov. J. Clin. Endocrinol. METABO. 65, 738-741. Nishimori, K., Young, LJ, Guo, Q., Wang, Z., Insel, TR, Matzuk, MM, 1996. Oxytocín je potrebný pre ošetrovanie, ale nie je nevyhnutný pre pôrod alebo reprodukčné správanie. Proc. Natl. Acad. Sci. Spojené štáty americké 93, 11699-11704. Patel, S., Freedman, S., Chapman, KL, Emms, F., Fletcher, AE, Knowles M., Marwood R., McCallister G., Myers J., Curtis J., Kulagowski, JJ, Leeson, PD, Ridgill, M., Graham, M., Matheson, S., Rathbone, D., Watt, AP, Bristow, LJ, Rupniak, NM, Baskin, E., Lynch, , 1997. Biologický profil L745,870, selektívneho antagonistu s vysokou afinitou k receptoru dopamínu D4. J. Pharmacol. Exp. Ther. 283, 636-647. Pedersen, CA, Caldwell, JD, Jirikowski, GF, Insel, TR, 1992. Oxytocín v materinskom, sexuálnom a sociálnom správaní, Annals of the New York Academy of Sciences, zv. 652. New York Academy of Sciences, New York. Petrovič, P., Kalisch, R., Singer, T., Dolan, RJ, 2008. Oxytocín zmierňuje afektívne hodnotenie kondiciovaných tvárí a amygdálnej aktivity. J. Neurosci. 28, 6607-6615. Pfaus, JG, Everitt, BJ, 1995. Psychofarmakológia sexuálneho správania. In: Knobil, FE, Kupfer, DJ (Eds.), Psychopharmacology: štvrtá generácia pokroku. Raven Press, New York, str. 742-758. Rajfer, J., Aronson, WJ, Bush, PA, Dorey, FJ, Ignarro, LJ, 1992. Oxid dusnatý ako sprostredkovateľ relaxácie corpus cavernosum ako odpoveď na neadrenergnú, noncholinergnú neurotransmisiu. N. Engl. J. Med. 326, 90-94. Roeling, TAP, Van Erp, AMM, Meelis, W., Kruk, MR, Veening, JG, 1991. Behaviorálne účinky NMDA injekcie do hypotalamického paraventrikulárneho jadra potkana. Brain Res. 550, 220-224. Sachs, BD, 1997. Erekcia vyvolaná u samcov potkanov vzdušnou vôňou estrických žien. Physiol. Behave. 62, 921-924. Sachs, BD, 2000. Kontextuálne prístupy k fyziológii a klasifikácii erektilnej funkcie, erektilnej dysfunkcie a sexuálneho vzrušenia. Neurosci. Biobehav. Rev. 24, 541-560. Sachs, BD, 2007. Kontextová definícia mužského sexuálneho vzrušenia. Horm. Behave. 51, 569-578. Sanchez, F., Alonso, JR, Arevalo, R., Blanco, E., Aijon, J., Vazquez, R., 1994. Koexistencia NADPH-diaforázy s vazopresínom a oxytocínom v hypotalamických magnocelulárnych neurosecretorových jadrách potkana. Cell Tissue Res. 276, 31-34. Sanna, F., Succu, S., Boi, A., Melis, MR, Argiolas, A., 2009. Inhibítory fosfodiesterázy typu 5 uľahčujú bezkontaktnú erekciu samcov potkanov: miesto pôsobenia v mozgu a mechanizmus účinku. J. Sex. Med. 6, 2680-2689. Saphier, D., Feldman, S., 1987. Účinky septálnych a hipokampálnych stimulov na neuróny paraventrikulárneho jadra. Neuroscience 20, 749-755. Sato-Suzuki, I., Kita, I., Oguri, M., Arita, H., 1998. Stereotypné zívacie odozvy indukované elektrickou a chemickou stimuláciou paraventrikulárneho jadra potkana. J. Neurophysiol. 80, 2765-2775. Schuman, EM, Madison, DV, 1994. Oxid dusnatý a synaptická funkcia. Ann. Rev. Neurosci. 17, 153-183. Snyder, SH, 1992. Oxid dusnatý: najskôr v novej triede neurotransmiterov? Veda 254, 494-496. Sofroniew, MV, 1983. Vasopresín a oxytocín v mozgu a mieche cicavcov. Trendy Neurosci. 6, 467-472. Sokoloff, P., Schwartz, JC, 1995. Nové dopamínové receptory o pol desať rokov neskôr. Trends Pharmacol. Sci. 16, 270-275. Southam, E., Garthwaite, J., 1993. Signálna dráha oxidov dusíka - cyklická GMP v mozgu potkanov. Neurofarmakológia 32, 1267-1277. Stancampiano, R., Melis, MR, Argiolas, A., 1994. Vytváranie penisu a zívanie indukované agonistami 5-HT1c u samcov potkanov: vzťah s dopaminergným a oxytocinergným prenosom. E. J. Pharmacol. 261, 149-155. Succu, S., Mascia, MS, Sanna, F., Melis, T., Argiolas, A., Melis, MR, 2006. Kanabinoidný antagonista receptora CB1 SR 141716A indukuje erekciu penisu zvýšením extracelulárnej kyseliny glutámovej v paraventrikulárnom jadre samčích potkanov. Behave. Brain Res. 169, 274-281. Succu, S., Sanna, F., Melis, T., Boi, A., Argiolas, A., Melis, MR, 2007. Stimulácia dopamínových receptorov v paraventrikulárnom jadre hypotalamu samcov potkanov indukuje erekciu penisu a zvyšuje extracelulárny dopamín v nucleus accumbens: účasť centrálneho oxytocínu. Neurofarmakológia 52, 1034-1043. Succu, S., Sanna, F., Cocco, C., Melis, T., Boi, A., Ferri, GL, Argiolas, A., Melis, MR, 2008. Oxytocín indukuje erekciu penisu po injekcii do ventrálnej tegmentálnej oblasti samcov potkanov: úloha oxidu dusnatého a cyklického GMP. E. J. Neurosci. 28, 813-821. Tanda, G., Pontieri, FE, Di Chiara, G., 1997. Kanabinoidy a heroínová aktivácia prenosu mezolimbického dopamínu prostredníctvom bežného mechanizmu mu1 opioidného receptora. Veda 276, 2048-2050. Tang, Y., Rampin, O., Calas, A., Facchinetti, P., Giuliano, F., 1998. Oxytocinergná a serotonínergná inervácia identifikovaných lumbosakrálnych jadier, ktoré kontrolujú erekciu penisu u samcov potkanov. Neuroscience 82, 241-254. Theodosis, DT, 1985. Oxytocín-imunoreaktívne terminály synapse na oxytocínových neurónoch v superoptických jadrách. Príroda (Londýn) 313, 682-684. Tindall, JS, 1974. Stimuly, ktoré spôsobujú uvoľňovanie oxytocínu. In: Geiger, SR, Knobil, E., Sawyer, WH, Greef, R., Astwood, EB (Eds.), Príručka fyziológie. Sekta. 7, Endocrinology, zv. IV. Americká fyziologická spoločnosť, Washington DC, s. 257-267. Torres, G., Lee, S., Rivier, C., 1993. Ontogénnosť syntetázy oxidu dusnatého na potkanoch a kolokalizácia neuropeptidmi. Mol. Bunka. Neurosci. 4, 155-163. Uhl-Bronner, S., Waltisperger, E., Martinez-Lorenzana, G., Condes, LM, Freund-Mercier, MJ, 2005. Sexuálne dimorfická expresia väzobných miest oxytocínu v prednom mozgu a mieche potkana. Neuroscience 135, 147-154. Vaccari, C., Lolait, SJ, Ostrowski, NL, 1998. Porovnávacia distribúcia vazopresínu V1b a ribonukleových kyselín receptoru oxytocínu v mozgu. Endokrinológia 139, 5015-5033. Van Den Pol, A., 1991. Glutamátová a aspartátová imunoreaktivita v hypotalamických presynaptických axónoch. J. Neurosci. 11, 2087-2101. Veronneau-Longueville, F., Rampin, O., Freund-Mercier, MJ, Tang, Y., Calas, A., Marson, L., McKenna, KE, Stoeckel, ME, Benoit, G., Giuliano, F. , 1999. Oxytocinergná inervácia autonómnych jadier, ktoré kontrolujú erekciu penisu u potkanov. Neuroscience 93, 1437-1447. Vincent, SR, Kimura, H., 1992. Histochemické mapovanie syntázy oxidu dusnatého v mozgu potkanov. Neuroscience 46, 755-784. Wagner, CK, Clemens, LG, 1993. Cesta obsahujúca neurofyzín z paraventrikulárneho jadra hypotalamu do pohlavne dimorfného motorického jadra v bedrovej mieche. J. Comp. Neurol. 336, 106-116. Winslow, JT, Insel, TR, 1991. Sociálny stav v pároch opíc druhu veverička určuje reakciu správania na centrálnu aplikáciu oxytocínu. J. Neurosci. 11, 2032-2038. Múdre, RA, Rompre, P.-P., 1989. Mozog dopamín a odmena. Ann. Rev. Psychol. 40, 191-225. Witt, DM, Insel, TR, 1994. Mužské sexuálne správanie aktivuje proteín podobný c-fos v oxytocínových neurónoch v paraventrikulárnom jadre hypotalamu. J. Neuroendocrinol. 6, 13-18. Witter, MP, 2006. Spojenie subikulum potkana: topografia vo vzťahu k stĺpcovým a laminárnym organizáciám. Behav Brain Res. 174, 251-264. Woodruff, GN, Foster, AC, Gill, R., Kemp, JA, Wong, EH, Iversen, LL, 1987. Interakcia medzi MK-801 a receptorami pre N-metyl-d-aspartát: funkčné dôsledky. Neurofarmakológia 26, 903-909. Yamashita, H., Shigeru, O., Inenaga, K., Kasai, M., Uesugi, S., Kannan, H., Kaneko, T., 1987. Oxytocín prevažne vyvoláva predpokladané oxytocínové neuróny v superoptickom jadre potkana in vitro. Brain Res. 416, 364-368. Yells, DP, Hendricks, SE, Prendergast, MA, 1992. Látky jadra paragigantocelulárny: účinky na správanie párov u samcov potkanov. Brain Res. 596, 73-79. Young, WS, Shepard, E., Amico, J., Hennighausen, L., LaMarca, ME, McKinney, C., Ginns, EI, 1996. Nedostatok mytokového oxytocínu zabraňuje vylučovaniu mlieka, ale nie plodnosti alebo pôrodu. J. Neuroendocrinol. 8, 847-854. Zahran, AR, Vachon, P., Courtois, F., Carrier, S., 2000. Zvýšenie intracavernózneho penilného tlaku po injekcii agonistov receptora excitačných aminokyselín v hypotalamickom paraventrikulárnom jadre anestetizovaných potkanov. J. Urol. 164, 1793-1797.