Biol Psikiatria. 2008 Dhjetor 1; 64 (11): 941-50. Epub 2008 Korrik 26.
Teegarden SL, Nestler EJ, Bale TL.
Burim
Departamenti i Biologjisë Kafshëve, Universiteti i Pensilvanisë, Philadelphia, PA 19104-6046, SHBA.
Abstrakt
HISTORIKU:
Ndjeshmëria ndaj shpërblimit është implikuar si një faktor predispozues për sjelljet që lidhen me abuzimin e drogës, si dhe duke ngrënë. Megjithatë, mekanizmat themelorë që kontribuojnë në ndjeshmërinë e shpërblimit janë të panjohura. Ne hypothesized se një dysregulation në doping sinjalizuar mund të jetë një shkak themelor i rritjes ndjeshmëri shpërblim, ku stimuj të dobishme mund të veprojë për të normalizuar sistemin.
METODAT:
Ne kemi përdorur një model gjenetik të miut për rritjen e ndjeshmërisë së shpërblimit, Delta FosB-overexpressing mouse, për të shqyrtuar ndryshimet në rrugën e shpërblimit në përgjigje të një diete të shijshme me yndyrë të lartë. Shenjat e sinjalizimit shpërblim në këto minj janë ekzaminuar si në bazë dhe pas javëve 6 të ekspozimit të shijshëm të dietë. Mice u ekzaminuan në një test të sjelljes pas tërheqjes së dietëve me yndyrë të lartë për të vlerësuar vulnerabilitetin e këtij modeli në heqjen e stimujve të dobishme.
Rezultatet:
Rezultatet tona demonstrojnë aktivizimin e ndryshuar të rrugës së shpërblimit përgjatë qarkut tegmental të nucleus accumbens-hipotalamus-ventral që rezulton nga mbishprehja e Delta FosB në nucleus accumbens dhe rajonet striatale . Nivelet e proteinës lidhëse të elementit të përgjigjes së monofosfatit ciklik të adenozinës fosforiluar (cAMP) (pCREB), faktorit neurotrofik të derivuar nga truri (BDNF) dhe fosfoproteinës së rregulluar nga dopamina dhe monofosfati ciklik i adenozinës me një masë molekulare prej 32 kDa (DARPP-32) në nucleus accumbens u ulën në minjtë Delta FosB, duke sugjeruar sinjalizim të reduktuar të dopaminës. Gjashtë javë ekspozimi ndaj dietës me shumë yndyrë i përmirësuan plotësisht këto ndryshime, duke zbuluar kapacitetin e fuqishëm shpërblyes të një diete të shijshme. Minjtë Delta FosB gjithashtu treguan një rritje të konsiderueshme në aktivitetin lokomotor dhe përgjigjet e lidhura me ankthin 24 orë pas tërheqjes nga dieta me shumë yndyrë.
PËRFUNDIME:
Këto rezultate krijojnë një ndjeshmëri themelore ndaj ndryshimeve në shpërblim që lidhen me çrregullimin e Delta FosB dhe sinjalizimin e dopaminës që mund të normalizohet me dieta të shijshme dhe mund të jetë një fenotip predispozues në disa forma të obezitetit.
Prezantimi
Pavarësisht njohurive tona në rritje për sistemet nervore që kontrollojnë oreksin dhe ngopjen, shkalla e obezitetit vazhdon të rritet në Shtetet e Bashkuara. Trajtimet aktuale me ilaçe kanë efikasitet të kufizuar dhe modifikimet e sjelljes vuajnë nga pajtueshmëri minimale afatgjatë (1). Konsumi i ushqimeve me dendësi kalorike dhe të shijshme është lidhur me ndryshimet në rrugët e stresit dhe shpërblimit në tru, duke sugjeruar që vetitë shpërblyese të ushqimeve të tilla mund të mbivendosin sinjalet e ekuilibrit të energjisë (2-4). Ushqimet e pasura me yndyrë veprojnë si shpërblime natyrore, duke aktivizuar qendrat e shpërblimit në tru në një mënyrë të ngjashme me drogat e abuzimit, dhe si të tilla janë përdorur në paradigmat e vetë-administrimit (5-8). Kështu, ka të ngjarë që sjelljet dhe motivimi për të ngrënë shumë dhe për abuzimin me drogën të ndajnë mekanizma të përbashkët themelorë, duke hapur potencialisht rrugë të reja trajtimi për të dyja gjendjet.
Në studimin e marrëdhënies midis ushqimeve të shijshme dhe rrugëve që rregullojnë shpërblimin dhe stresin në tru, ne kemi identifikuar më parë shënjues molekularë dhe biokimikë të shpërblimit të reduktuar dhe stresit të rritur pas tërheqjes nga një dietë e shijshme me shumë yndyrë (HF). Ngjashëm me drogat e abuzimit, ekspozimi ndaj një diete të shijshme në studimet tona rezultoi në nivele të rritura të faktorit të transkriptimit ΔFosB në nucleus accumbens (NAc), një strukturë qendrore e shpërblimit të trurit (9, 10) . Minjtë që shprehin në mënyrë të tepërt ΔFosB tregojnë një përgjigje instrumentale në rritje për një shpërblim ushqimor (11), duke i bërë ata një mjet të vlefshëm për të shqyrtuar rolin e ndjeshmërisë ndaj shpërblimit dhe çrregullimit afatgjatë të sistemit të shpërblimit në përgjigjet molekulare dhe biokimike ndaj një diete të shijshme.
Në studimin e tanishëm, ne përdorëm minjtë që shprehin tepër ΔFosB për të shqyrtuar ndryshimet afatgjata në shënuesit e shpërblimit në neuroqarkun e zonës tegmentale NAc-hipotalamus-ventral (VTA) në përgjigje të një diete HF të shijshme. Bazuar në studimet e mëparshme në këta minj të ndjeshëm ndaj shpërblimit, ne hipotetizuam se ndryshimet e shkaktuara nga ΔFosB në ndjeshmërinë e shpërblimit përfshijnë një çrregullim në sinjalizimin e dopaminës që rezulton nga reagimi i NAc ndaj VTA. Për më tepër, ne hipotetizuam se ekspozimi ndaj një shpërblimi natyror të një diete HF me dendësi të lartë energjie do të normalizonte sistemin dopaminergjik në këta minj, duke rezultuar në një përgjigje të ekzagjeruar ndaj stresit të tërheqjes nga kjo dietë HF . Aspekti unik i përdorimit të një diete të shijshme si një substancë shpërblyese na lejon të përfshijmë inputet hipotalamike për të shpërblyer qarkun në një fenotip që mund të jetë parashikues i një popullate të predispozuar ndaj obezitetit rezistent ndaj trajtimit. Për të shqyrtuar këtë hipotezë, ne studiuam shënuesit e neurotransmetimit të dopaminës, duke përfshirë pCREB, BDNF dhe DARPP-32 në NAc dhe tirozinë hidroksilazë dhe transportuesin e dopaminës në VTA, pas ekspozimit ndaj HF. Ne gjithashtu shqyrtuam shënues specifikë të ekuilibrit të energjisë të njohur për ndikimin në prodhimin e dopaminës, duke përfshirë receptorët e leptinës dhe oreksinës në VTA dhe shprehjen e oreksinës brenda hipotalamusit lateral.
Materialet dhe Metodat
kafshët
Minjtë bitransgjenikë që mbizotëronin me induksion ΔFosB në neuronet dinamorfin pozitive në NAc dhe striatum dorsal (Kelz et al., 1999) u krijuan në një sfond të përzier (ICR: C57Bl6 / SJL) në Qendrën Mjekësore Jugperëndimore të Universitetit të Teksasit dhe mbajtën dhe testuar në Universitetin e Pensilvanisë. Të gjitha minjtë u mbajtën në doxycycline (100 μg / ml në ujë të pijshëm) deri në mbërritjen në Universitetin e Pensilvanisë. Për të nxitur overexpression, doxycycline është hequr (n = 23) (12). Minj e kontrollit (n = 26) vazhdoi të marrë ilaçin. Mice u caktuan në grupet e dietës tetë javë pas heqjes së doxycyline në të cilën shprehja kohë ka treguar të arrijë nivelet maksimale (13). Mice u mbajtën në një cikël 12: 12 dritë-errët (dritat në 0700) me ushqim dhe ujë në dispozicion ad libitum. Të gjitha studimet u kryen në bazë të protokolleve eksperimentale të miratuara nga Komiteti i Kujdesit dhe Përdorimit të Institucioneve Shoqërore të Pensilvanisë, dhe të gjitha procedurat u zhvilluan në përputhje me udhëzimet institucionale.
Ekspozimi i dietës
Mice u mbajtën në shtëpi chow (n = 16) ose vendosur në HF (n = 16-17) për gjashtë javë. Chow shtëpi (Purina Lab Diet, St Louis, MO) përmban 4.00 kcal / g, i përbërë nga 28% proteina, 12% yndyrë, dhe 60% karbohidrate. Dieta HF (Research Diets, New Brunswick, NJ) përmbante 4.73 kcal / g, që përbëhej nga 20% protein, 45% yndyrë dhe 35% karbohidrate.
Biokimi dhe shprehja e gjeneve
Minjtë u analizuan pas gjashtë javë të ekspozimit në dietë. Trurit u hoqën nga kafka dhe ose të ngrirë të gjithë në akull të thatë ose NAc dissected (rreth 0.5 - 1.75 mm nga bregma, në një thellësi prej 3.5 - 5.5 mm) dhe të ngrira në azot të lëngshme. Tungja është ruajtur në -80 ° C derisa të analizohet.
Analizat biokimike
Metodat për blotet perëndimore janë përshkruar në materiale plotësuese. Antitrupat e përdorur ishin: Cdk5, CREB dhe BDNF (1: 500, Santa Cruz Biotechnology, Santa Cruz, CA) dhe phospho-CREB (pCREB) (Ser 133).
Autoradiografia e receptorit
Metodat e hollësishme për autoradiografi përshkruhen në materiale plotësuese. Ligands të përdorura ishin 2 nM H3 - SCH 23390 dhe 5 nM H3 - spiperone (PerkinElmer, Boston, MA).
Hibridizimi në situ
Përpunimi i indit dhe hibridizimi janë kryer siç përshkruhet më parë (14). Prova DARPP-32 u sigurua me mirësjellje nga P. Greengard (Universiteti Rockefeller), dhe hetimi oreksin nga J. Elmquist (Universiteti i Qendrës Mjekësore Jugperëndimore të Teksasit). Slides testuar për DARPP-32 ishin caktuar për të filmuar për 3 ditë, dhe slides testuar për orexin ishin caktuar për të filmuar për 4 ditë. Kuantifikimi i imazheve të filmit u zhvillua siç u përshkrua më sipër (10).
QRT-PCR
ARN u izolua nga VTA dhe shprehja e gjeneve individuale të vlerësuara duke përdorur testet e shprehjes së TaqMan (Applied Biosystems, Foster City, CA). Metoda të hollësishme dhe analiza statistikore mund të gjenden në materiale plotësuese.
Analiza të sjelljes
Me qëllim të shqyrtimit të efekteve të ndjeshmërisë së shpërblimit në ndryshimet e sjelljes të nxitur nga dieta, një nëngrup i minjve u tërhoq nga HF pas katër javëve të ekspozimit dhe u kthye në shtëpi chow (n = kontroll 9, n = 8 ΔFosB). Njëzet e katër orë pas tërheqjes, minj u ekspozuan në testin e hapur në terren në përputhje me paradigmën e tërheqjes dietike të publikuar më parë (10). Shkurtimisht, miu u vendos në qendër të aparatit të fushës së hapur dhe u monitorua për pesë minuta. Kalimet e linjave totale, boli fekal, koha në qendër, dhe kalimet në qendër janë matur.
të dhëna statistikore
Të gjitha të dhënat, përveç njollave Western u analizuan duke përdorur një ANOVA dykahëshe e ndjekur nga testi PLSD i Fisherit me trajtimin e doksiciklinës (shprehja ΔFosB) dhe gjendjen e dietës si variablat e pavarur. Për analizat e RT-PCR, u përdor një vlerë e zvogëluar P për të korrigjuar krahasimet e shumta brenda grupeve të gjeneve të lidhura (shih materialet shtesë). Blots Western u analizuan duke përdorur testin t të studentit me trajtimin e doksiciklinës si variabël të pavarur, duke krahasuar dendësitë optike brenda të njëjtës njollë. Të gjitha të dhënat paraqiten si mesatare EM SEM.
Rezultatet
Dallimet bazike biokimike
Për të sqaruar rrugët molekulare që qëndrojnë në themel të ndjeshmërisë së shpërblimit të shtuar në minj të mbishprehur të ΔFosB, nivelet e disa molekulave kryesore të sinjalizimit u ekzaminuan në NAc. Kishte një tendencë për rritjen e niveleve të Cdk5 në NAc të minjve ΔFosB krahasuar me kafshët e kontrollit të shokut të mbeturinave të mbajtura në doksiciklinë (F = 5.1, P = 0.08; Fig. 1A). Minjtë ΔFosB shprehën nivele të reduktuara ndjeshëm të pCREB (F = 7.4, P <0.05; Fig. 1B) si dhe nivelet totale të CREB (F = 5.4, P = 0.05; Fig. 1C). Një zvogëlim i dukshëm në BDNF u vu re edhe në NAc të minjve ΔFosB (F = 10.6, P <0.05; Fig. 1D).
Figura 1
Zmadhimi i tepërt i minjve ΔFosB shfaqi shënuesit biokimik të sinjalizimit të reduktuar të dopaminës në NAc
Marrja e ushqimit dhe pesha e trupit në dietë të lartë yndyrë
Ne më tej shqyrtuam efektet e një diete HF natyrshëm të dobishme në ndryshimet në molekulat sinjalizuese në minjtë që shprehin ΔFosB. Nuk kishte dallime midis minjve ΔFosB dhe kontrolleve në marrjen e ushqimit në shtëpi ose në HF. Sidoqoftë, kishte një rënie të përgjithshme në marrjen e kalorive të normalizuar në peshën e trupit kur ekspozohej ndaj HF që ishte specifike për minjtë ΔFosB (F = 11.2, P <0.01; Fig. 2A). Në fund të gjashtë javëve të ekspozimit në dietë, minjtë që merrnin HF peshonin dukshëm më shumë sesa ata që ishin në dietë chow (F = 17.2, P <0.001), dhe minjtë ΔFosB peshonin më pak në përgjithësi sesa kontrollet (F = 5.6, P <0.05; Fig. 2B) Ky efekt ishte specifik për ndryshimet midis grupeve në dietën chow (P <0.05).
Figura 2
Minjtë e ekspresionit të ΔFosB nuk treguan asnjë dallim në marrjen e ushqimit në ushqimin e ngrënshëm ose të lartë (HF)
Ndryshimet biokimike në dietën e yndyrës së lartë
Për të përcaktuar se si diferencat bazë në sinjalizimin e NAc mund të ndryshohen nga dieta HF, të njëjtat proteina sinjalizuese të studiuara në bazë u shqyrtuan në kafshë që kishin marrë gjashtë javë HF. Nuk kishte dallime të konsiderueshme në nivelet Cdk5 (Fig. 3A). Nivelet e pCREB dhe CREB total nuk ishin më të ndryshme pas gjashtë javë të HF (Fig. 3B, C). Nivelet e BDNF u rritën ndjeshëm në minjtë ΔFosB pas gjashtë javëve të ekspozimit HF (F = 6.5, P = 0.05, Fig. 3D).
Figura 3
Dieta me yndyrë të lartë (HF) përmirëson dallimet sinjalizuese të vërejtura në NAc të minjve të ekspresionit të ΔFosB
Autoradiografia e receptorit dopamina
Ne përdorëm autoradiografinë e receptorëve për të vlerësuar nëse ndryshimet e shkaktuara nga ΔFosB në sinjalizimin e dopaminës në NAc janë të lidhura me ndryshimet në shprehjen e receptorëve të dopaminës (Fig. 4A). Dieta me yndyrna të larta duket se rrit pak dendësinë e lidhjes së receptorëve dopamine D1 (P = 0.14), dhe kjo ndryshim ishte më e madhe te minjtë ΔFosB (Fig. 4B). Kishte gjithashtu një tendencë drejt një rritje në zonën e lidhjes D1 pas HF (P = 0.06), dhe testimi post hoc tregoi që kjo të ishte domethënëse në minjtë ΔFosB (P <0.05; Fig. 4C). Në ndryshim nga receptorët D1, nuk ka ndryshime në dendësinë e lidhjes së receptorëve D2 (kontrolli chow = 97.6 ± 6.9, kontrolli HF = 101.1 ± 8.2, ΔFosB chow = 91.6 ± 1.0, ΔFosB HF = 94.8 ± 9.5) ose zona e lidhjes (chow kontroll = 47.3 ± 3.4, kontrolli HF = 53.8 6.0, ΔFosB chow = 51.9 3.7, ΔFosB HF = 49.0 ± 3.3) në NAc janë vërejtur.
Figura 4
Dieta me yndyrë të lartë (HF) çoi në ndryshime në receptorin D1 receptor dopamin dhe shprehjen DARPP-32 në nucleus accumbens (NAc) të minjve overexpressing ΔFosB
Shprehja DARPP-32 në NAc
Hibridizimi in situ u përdor për të përcaktuar nivelet e shprehjes së DARPP-32 në NAc (Fig. 4D). Dieta me yndyrna të larta rriti ndjeshëm shprehjen e DARPP-32 në këtë rajon të trurit (F = 5.1, P <0.05) dhe kishte një ndërveprim të rëndësishëm midis dietës dhe shprehjes ΔFosB (F = 8.9, P <0.05), me minjtë ΔFosB ndryshimi i nxitur nga dieta (Fig. 4E). Një ndryshim themelor në shprehjen DARPP-32 midis minjve të kontrollit dhe ΔFosB u zbulua nga testimi post hoc (P <0.01), si dhe një rritje e konsiderueshme në shprehjen e DARPP-32 në minjtë ΔFosB në HF (P <0.01).
Shprehja e Genes në VTA
QRT-PCR u përdor për të vlerësuar ndryshimet në shprehjen e gjeneve në VTA, duke synuar disa gjene kryesore të implikuara më parë në rregullimin e shpërblimit. Të gjithë mostrat u normalizuan në β-aktin. Për të siguruar që shprehja e β-aktinës nuk u ndryshua nga trajtimi, u zhvillua një provë e veçantë për të krahasuar β-aktin me një kontroll të dytë të brendshëm, GAPDH. Nuk kishte dallime të konsiderueshme në shprehjen e β-aktinës (vlerat ΔCT, β-aktin - GAPDH: kontrolli chow = 2.29 ± 0.21, kontrolli HF = 2.01 ± 0.04, ΔFosB chow = 2.32 ± 0.49, ΔFosB HF = 2.37 ± 0.10).
Expressionshtë vërejtur një prirje për një ndërveprim midis shprehjes ΔFosB dhe trajtimit dietë për shprehjen e hidroksilazës së tirosinës (F = 3.6, P <0.06; Fig. 5A). Gjashtë javë të ekspozimit ndaj HF duket se ulin shprehjen e hidroksilazës së tirozinës në minjtë e kontrollit dhe rrisin shprehjen në minjtë ΔFosB. Një ndërveprim i rëndësishëm midis shprehjes ΔFosB dhe ekspozimit në dietë u vu re për shprehjen e transportuesit të dopaminës (F = 6.7, P <0.03; Fig. 5B). Ngjashëm me hidroksilazën e tirosinës, ekspozimi ndaj HF zvogëloi shprehjen e transportuesit të dopaminës në minjtë e kontrollit dhe rrit ndjeshëm shprehjen në minjtë ΔFosB (P <0.05). Dallimi bazë në shprehjen e transportuesit të dopaminës midis minjve të kontrollit dhe ΔFosB nuk arriti rëndësi (P = 0.16), por pas 6 javësh HF, minjtë ΔFosB shprehën nivele të ngritura dukshëm të transportuesit të dopaminës në krahasim me kontrollet (P <0.05).
Figura 5
Ekspozimi i lartë i dietës së yndyrë (HF) dhe shprehja ΔFosB çuan në ndryshime në shprehjen e një numri të molekulave kyçe në VTA
Kishte një prirje që tregon një efekt të rritjes së shprehjes ΔFosB për të ulur nivelet e TrkB në VTA (F = 5.7, P <0.04; Fig. 5C). Megjithëse nuk kishte efekte kryesore në shprehjen e receptorëve κ-opioid, ekzistonte një prirje drejt shprehjes së zvogëluar në minjtë ΔFosB (P = 0.08; Fig. 5D). Shprehja e receptorit të leptinës u përcaktua edhe në VTA. U gjet një efekt i rëndësishëm i ekspozimit në dietë (F = 6.1, P <0.03), me HF që zvogëlon ndjeshëm nivelet e receptorit të leptinës në VTA në të dy ΔFosB dhe minjtë e kontrollit (Fig. 5E). Shprehja e receptorit të oreksinës 1 në VTA u ekzaminua gjithashtu. Ka pasur një efekt të rëndësishëm të dietës në shprehjen e receptorit të oreksinës (F = 9.0, P <0.02), me minjtë e ekspozuar ndaj HF që shprehin nivele më të larta në VTA (Fig. 5F). Ekzistonte gjithashtu një prirje që minjtë ΔFosB të shprehnin nivele të përgjithshme më të larta të receptorit 1 të oreksinës në këtë rajon të trurit (P <0.05).
Shprehja e Orexin në hypothalamus lateral
Ne matëm nivelet e oreksinës në hipotalamusin anësor, origjina e inervimit oreksinergjik të VTA, nga hibridizimi in situ (Fig. 6A). Kishte një ndërveprim të rëndësishëm midis shprehjes së ΔFosB dhe ekspozimit të dietës në shprehjen e oreksinës (F = 9.1, P <0.01), me HF që rrit ndjeshëm nivelet e oreksinës në minjtë e kontrollit (P <0.05) dhe zvogëlon shprehjen te minjtë ΔFosB (Fig. 6B). Megjithëse nuk kishte ndryshime të rëndësishme në shprehjen e oreksinës në gjendjen bazale, pas 6 javësh HF, minjtë ΔFosB shprehën nivele të reduktuara ndjeshëm të oreksinës në krahasim me kontrollet (P <0.05).
Figura 6
Dieta me yndyrë të lartë (HF) kishte efekte diferenciale në shprehjen orexin në kontroll (Ctrl) dhe minjtë e ekspresionit ΔFosB
Analizat e sjelljes
Për të vlerësuar ndryshimet në eksitim dhe emocionalitet për shkak të ndryshimit të dietës, minjtë u ekspozuan ndaj testit të fushës së hapur 24 orë pas tërheqjes së dietës HF (10). Kryqëzimet totale të vijave, të cilat u shënuan si një masë e zgjimit, u ndikuan ndjeshëm nga shprehja ΔFosB (F = 6.6, P <0.05) dhe dieta (F = 4.6, P <0.05; Fig. 7A). Minjtë ΔFosB ishin më aktivë në mjedisin e ri sesa kontrilët, dhe testimi post hoc tregoi se minjtë e tërhequr nga HF ishin dukshëm më aktivë sesa ata të ekspozuarit ndaj chow (P <0.05). Boli i fekaleve u numërua si një masë e sjelljes së ngjashme me ankthin (10). Ekzistonte një efekt kryesor i shprehjes ΔFosB (F = 10.2, P <0.01), me minj mbivlerësues të ΔFosB duke prodhuar më shumë boli fekal në mjedisin e ri, veçanërisht në grupin e tërheqjes së shtëpisë dhe në tërheqjen e HF (Fig. 7B). Minjtë ΔFosB të mbajtur në dietë HF prodhuan më pak boli fekal sesa ata të mbajtur në chow dhe ata që tërhiqeshin 24 orë para testit. Minjtë e kontrollit nuk duket se janë prekur nga dieta. Nuk kishte efekte domethënëse të shprehjes ΔFosB ose dietës në kohën e kaluar në qendër të fushës së hapur (kontrolli i zakonshëm = 14.5 3.1 sek, kontrolli HF = 18.0 ± 3.2 sek, kontrolli W / D = 15.4 ± 1.9 sek, kontrolli ΔFosB = 16.9 ± 2.4 sek, ΔFosB HF = 13.1 ± 3.9 sek, ΔFosB W / D = 19.8 ± 2.6 sek)
Figura 7
Mouse over-expressing ΔFosB ishin më të ndjeshëm ndaj efekteve të tërheqjes me dietë të lartë yndyrë (HF)
Diskutim
Në trajtimin e obezitetit, ekziston një nevojë kritike për identifikimin e faktorëve që ndikojnë në ndjeshmërinë ndaj ngrënies së tepërt dhe shtimit në peshë. Shtigjet e shpërblimit në tru luajnë një rol të rëndësishëm në motivimin dhe reagimin ndaj ushqimeve të shijshme dhe ndryshimeve në dietë (6, 10, 15, 16). Meqenëse sinjalet oreksigjenike dhe anoreksigjenike mund të ndikojnë drejtpërdrejt në sinjalizimin e shpërblimit nëpërmjet një qarku hipotalamus-VTA-NAc, sqarimi i gjeneve që i përgjigjen dietave të shijshme të pasura me energji brenda qendrave të shpërblimit mund të ofrojë objektiva të rinj terapeutikë në trajtimin e obezitetit (17, 18). Prandaj, ne shqyrtuam shënuesit biokimikë dhe molekularë të sinjalizimit të shpërblimit dhe ekuilibrit të energjisë përgjatë qarkut hipotalamus-VTA-NAc në përgjigje të një diete HF në minjtë që shprehin tepër ΔFosB si një model i ndjeshmërisë së shtuar ndaj ndryshimeve në shpërblim (13, 19, 20), dhe ndjeshmërinë e sjelljes pas tërheqjes nga dieta. Ne hipotetizuam se çrregullimi bazal i sinjalizimit të dopaminës në minjtë ΔFosB do të normalizohej nga efektet shpërblyese të një diete HF, duke përfshirë kryqëzimin e sinjaleve të ekuilibrit të energjisë dhe sistemit të dopaminës.
Për të shqyrtuar shënuesit që tregojnë një çrregullim në sinjalizimin e dopaminës në NAc, ne shqyrtuam nivelet e receptorëve D1 dhe efektorët në rrjedhën e poshtme. Megjithëse nuk kishte dallime të rëndësishme në lidhjen e receptorit D1, kishte një tendencë që ekspozimi ndaj HF të rriste zonën e lidhjes në minjtë ΔFosB . Kjo është interesante pasi induksioni i ΔFosB nga ilaçet dhe shpërblimet natyrore duket se mbizotëron në nëntipin pozitiv ndaj dinorfinës të neuroneve me gjemba të mesëm që shprehin kryesisht receptorët D1 (9, 21). Nivelet e shënjestrës pCREB të sinjalizimit të dopaminës në rrjedhën e poshtme u ulën ndjeshëm në minjtë ΔFosB, duke mbështetur aktivizimin e reduktuar të receptorit D1 në këtë rajon të trurit (22, 23). Është interesante që ne gjithashtu zbuluam një rënie të konsiderueshme në nivelet totale të CREB në minjtë ΔFosB, duke sugjeruar një kapacitet të reduktuar më tej për transduksionin e sinjalit të dopaminës që mund të jetë sekondar ndaj reagimeve që vijnë nga një rënie e zgjatur në pCREB (24). Shprehja e BDNF rregullohet nga pCREB, rritet me aktivizimin e D1 dhe është një ndërmjetës i rëndësishëm i neuroplasticitetit të lidhur me shpërblimin në NAc (25, 26). Prandaj, ne zbuluam një rënie të ndjeshme të proteinës BDNF në NAc të minjve ΔFosB.
Të gjitha neuronet me gjemba të mesëm në NAc shprehin DARPP-32 (27). Efektorët e saj të shumtë në rrjedhën e poshtme e bëjnë atë një lojtar jetësor në rrugët e shpërblimit (28), dhe është implikuar në varësinë nga droga dhe në çrregullime të tjera që përfshijnë sistemin e dopaminës, duke përfshirë çrregullimet afektive dhe skizofreninë (27, 29). Ne zbuluam reduktime të thella bazale në shprehjen e DARPP-32 në NAc të minjve ΔFosB. Shprehja e DARPP-32 rregullohet nga BDNF, dhe për këtë arsye shprehja e reduktuar mund të lidhet drejtpërdrejt me reduktimet në nivelet e BDNF të zbuluara në minjtë ΔFosB (27, 29, 30). Edhe ndryshimet e moderuara në gjendjen e fosforilimit të DARPP-32 mund të çojnë në ndryshime të konsiderueshme në sinjalizimin intraqelizor brenda NAc (27). Studimet e mëparshme nuk kanë raportuar asnjë ndryshim në proteinën DARPP-32 te minjtë ΔFosB pas një heqjeje 12-javore nga doksiciklina kur u krye një vlerësim më i gjerë striatal (31), duke sugjeruar që efektet e ΔFosB në DARPP-32 mund të jenë specifike për kohën dhe rajonin.
Ne hipotetizuam se reduktimet dramatike në indekset e sinjalizimit të dopaminës në NAc të minjve ΔFosB ka të ngjarë të përfshijnë ndryshime në neuronet e projeksionit të dopaminës VTA, edhe pse ΔFosB nuk është i shprehur tepër brenda këtyre neuroneve . Prandaj, ne shqyrtuam shprehjen e gjeneve të lidhura me dopaminën në VTA, duke përfshirë tirozin hidroksilazën dhe transportuesin e dopaminës. Nivelet e tirozin hidroksilazës dhe transportuesit të dopaminës janë të lidhura pozitivisht me prodhimin e dopaminës. Kishte një tendencë që minjtë ΔFosB të shfaqnin tirozin hidroksilazë të reduktuar dhe një reduktim të ndjeshëm në transportuesin e dopaminës, në përputhje me çrregullimin e sinjalizimit të dopaminës në NAc . Meqenëse këto reduktime bazale në gjenet e lidhura me dopaminën në VTA të minjve ΔFosB me sa duket pasqyrojnë reagime të ndryshuara nga NAc gjatë mbishprehjes afatgjatë të ΔFosB , ne shqyrtuam shprehjen e receptorit BDNF, TrkB, si një mekanizëm të mundshëm të reagimit të NAc ndaj VTA (32). Ngjashëm me tirozin hidroksilazën dhe transportuesin e dopaminës, shprehja e TrkB tregoi gjithashtu një tendencë për t'u zvogëluar në mënyrë bazale në minjtë ΔFosB që nuk arriti rëndësi kur u korrigjua për krahasime të shumëfishta. Kompleksi BDNF-TrkB mund të transportohet në mënyrë retrograde dhe të veprojë brenda VTA për të ndikuar në shprehjen lokale të gjenit dhe për të nxitur rritjen dhe mirëmbajtjen e qelizave (33). Për më tepër, aktivizimi BDNF i TrkB presinaptike brenda NAc mund të stimulojë drejtpërdrejt neurotransmetimin e dopaminës (32), duke mbështetur një zvogëlim themelor të sinjalizimit të dopaminës në këta minj.
Aktivizimi i receptorëve κ-opioidë nga dinorfina rregullon sinjalizimin e dopaminës dhe është një mekanizëm tjetër me anë të të cilit NAc ofron reagime ndaj VTA-së (34). Ne zbuluam se shprehja e receptorit κ-opioid në VTA tregoi një tendencë për t'u zvogëluar në minjtë ΔFosB. Meqenëse mbishprehja e ΔFosB është treguar se ul shprehjen e dinorfinës në NAc (20), minjtë ΔFosB ka të ngjarë të kenë reduktime të thella në aktivizimin neto të κ-opioidëve të VTA-së. Megjithëse sinjalizimi i dinorfinës normalisht ushtron një efekt frenues në neuronet e dopaminës (35), minjtë që tregojnë vetë-administrim të shtuar të barnave të abuzimit shfaqin nivele të reduktuara të dinorfinës në NAc, duke treguar një rol për sinjalizimin bazal të reduktuar të dinorfinës në rritjen e ndjeshmërisë së shpërblimit (36, 37). Çrregullimi i sistemit dinorfinë - κ-opioid është lidhur me përvetësimin dhe vazhdimësinë e abuzimit me drogën, duke mbështetur një ekuilibër kritik të sinjalizimit opioid në normalizimin e shtigjeve të dopaminës (38).
Bazuar në kapacitetin shpërblyes të një diete me HF të dendur në energji, ne hipotetizuam se një çrregullim në sinjalizimin e shpërblimit të dopaminës dhe opioideve në minjtë ΔFosB do t'i predispozonte këta minj për përgjigje të shtuara shpërblimi ndaj një diete të tillë, duke normalizuar kështu sistemin e shpërblimit nëpërmjet aktivizimit të qarkut hipotalamus-VTA-NAc . Gjatë ekspozimit gjashtë-javor ndaj dietës, nuk u vunë re ndryshime në marrjen e ushqimit midis minjve ΔFosB dhe kontrollit, duke sugjeruar që ndryshimet e gjetura në shënuesit biokimikë dhe molekularë të sinjalizimit të shpërblimit në minjtë ΔFosB nuk ishin për shkak të ndryshimeve në kaloritë e konsumuara. Siç pritej, ndryshimet bazale të zbuluara në nivelet e pCREB, CREB total, BDNF, DARPP-32 dhe receptorëve κ-opioid midis minjve ΔFosB dhe kontrollit u dobësuan, ndoshta për shkak të rritjes së prodhimit të dopaminës në minjtë ΔFosB në HF (29, 39-41).
Ekzaminimi i tirozin hidroksilazës dhe transportuesit të dopaminës në VTA zbuloi përgjigje të habitshme të kundërta të minjve ΔFosB dhe kontrollit pas HF2 . Minjtë e kontrollit treguan një rënie në shprehjen e tirozin hidroksilazës dhe transportuesit të dopaminës, ndërsa minjtë ΔFosB shfaqën shprehje të rritur të të dy këtyre gjeneve të lidhura me dopaminën. Është interesante se shprehja e tirozin hidroksilazës ndryshohet në VTA nga administrimi kronik i kokainës ose metamfetaminës (42-44), duke sugjeruar që minjtë ΔFosB mund ta gjejnë shpërblimin natyror të HF më të spikatur sesa minjtë e kontrollit.
Në mënyrë që të shqyrtojmë se si mund të futen potencialë hipotalamika tek VTA mund të transmetojnë sinjale që reflektojnë balancën e energjisë, ekzaminimi i shprehjes së receptorit të leptinit dhe receptorit oreksin-1. Nivelet e qarkullimit të leptinit rriten me HF dhe leptina mund të veprojë në VTA për të ndryshuar sinjalizimin e dopamines (18, 45). Shprehja e receptorit të leptinës VTA u zvogëlua në mënyrë të ngjashme nga HF në të dyja ΔFosB dhe miunët e kontrollit, në përputhje me fitimin e peshës të ngjashme dhe marrjen e dietës ndërsa në HF. Lartë yndyra gjithashtu rrit shprehjen e receptorit oreksin-1 në VTA të të dy ΔFosB dhe minjve të kontrollit. Oreksina aktivizon neuronet e dopaminës në VTA, promovon plasticitetin VTA dhe rrit nivelin e dopaminës në NAc (46-48). Dieta me yndyrë të lartë është treguar të rrisë shprehjen orexin në minj, në përputhje me vëzhgimet tona (49, 50). Kështu, rritja e shprehjes së receptorit të oreksinës si dhe ndryshimet në sinjalizimin e leptin në VTA mund të nxisin shpërblimin e dietë në të dyja ΔFosB dhe minj të kontrollit, duke mbështetur një shkëputje midis rrugëve që transmetojnë sinjale të bilancit energjetik dhe ato të lidhura direkt me shpërblimin.
Për të shqyrtuar efektet stres-nxitës të tërheqjes së shpërblimit, minjtë u ekzaminuan në një test në fushë të hapur 24 orë pas heqjes së HF. Minjtë ΔFosB ishin më të ndjeshëm ndaj efekteve akute të tërheqjes nga dieta e preferuar, duke treguar aktivitet të shtuar të zgjimit dhe prodhim të bollgurëve fekalë në arenën e re të hapur krahasuar me të gjitha grupet e tjera të kontrollit dhe dietës. Minjtë ΔFosB gjithashtu treguan një model interesant sjelljeje në këtë test që sugjeron ndjeshmëri ndaj shpërblimit dhe stresit, me dietën HF që fillimisht reduktoi prodhimin e bollgurëve fekalë në krahasim me ushqimin, dhe tërheqja përsëri rriti këtë përgjigje të lidhur me ankthin. Kjo rritje e vëzhguar në aktivitetin në fushë të hapur nuk korreloi me ndryshimet në shprehjen e oreksinës, duke sugjeruar një marrëdhënie me zgjimin e shkaktuar nga stresi që nuk është thjesht një efekt i ndryshimeve në sinjalizimin e ndërmjetësuar nga oreksina. Në përgjithësi, këto të dhëna mbështesin hipotezën tonë se minjtë ΔFosB do të ishin më të ndjeshëm ndaj efekteve akute të tërheqjes nga dieta e preferuar për shkak të ndjeshmërisë së tyre të shtuar ndaj shpërblimit.
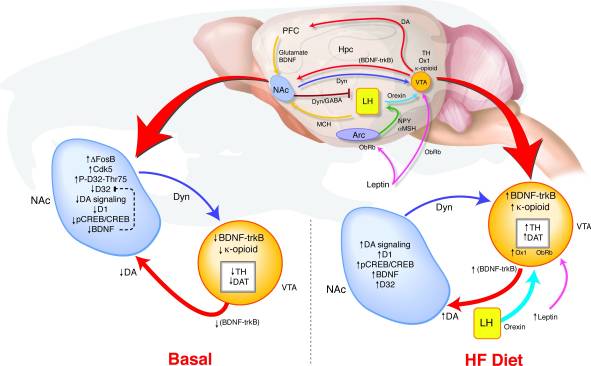
Si çon mbishprehja afatgjatë e ΔFosB në NAc në ndryshime të tilla në sjellje dhe sinjalizim shpërblimi ? Ne kemi propozuar një model të zbulimit të njëkohshëm të VTA ku reagimet e ndryshuara nga NAc dhe hipotalamusi transmetojnë sinjale në lidhje me gjendjen e shpërblimit për të përcaktuar rregullimin e sistemit të dopaminës që mund të mbështesë një lidhje midis çrregullimit të rrugës së shpërblimit dhe një predispozicioni ndaj obezitetit (Fig. 8). Gjatë ekspozimit ndaj HF, inpute të shumëfishta që pasqyrojnë si ekuilibrin e energjisë ashtu edhe gjendjen e shpërblimit konvergojnë në VTA. Rritjet në sinjalizimin e leptinës dhe oreksinës, si dhe reagimet e ndryshuara nga NAc në hipotalamusin lateral, mund të ndikojnë në mënyrën se si këto sinjale oreksigjenike i përgjigjen HF në minjtë ΔFosB (17, 18, 45, 47, 51-53). Rritjet e BDNF të shkaktuara nga dieta me shumë yndyrë mund të ofrojnë reagime shpërblimi për VTA, duke nxitur më tej ndryshimet në shprehjen e gjenit të lidhur me dopaminën.
Figura 8
Dieta me yndyrë të lartë (HF) normalizon sinjalizimin shpërblim të parregulluar në minjtë ΔFosB
Këto rezultate përshkruajnë markerë molekulare të ndjeshmërisë së shpërblimit dhe tregojnë se disregulimi afatgjatë i sistemit dopamin mund t'i predispozojë një individi të varësisë dhe obezitetit. Më tej, këto të dhëna ofrojnë një hap të rëndësishëm drejt përcaktimit të objektivave të reja terapeutike të mundshme në trajtimin dhe parandalimin e obezitetit dhe çrregullimeve të tjera që mund të përqendrohen në sistemin e shpërblimit. Në të ardhmen, do të jetë e rëndësishme të hetohet se si ky sistem reagon ndaj heqjes së dietës HF, si dhe të hetojë çdo ndryshim gjinor në ndjeshmërinë ndaj shpërblimit dhe ekspozimit të lartë të dietëve yndyrore.
Materiale plotësuese
Supp. metodat
Kliko këtu për të parë. (61K, doc)
Mirënjohje
Autorët dëshirojnë të falenderojnë Cathy Steffen për ndihmë me mbarështimin dhe transferimin e kafshëve. Kjo punë u mbështet nga një grant nga Qendra e Diabetit të Universitetit të Pensilvanisë (DK019525) dhe nga grante nga Instituti Kombëtar i Shëndetit Mendor (R01 MH51399 dhe P50 MH66172) dhe Instituti Kombëtar për Abuzimin e Drogës (R01 DA07359).
Shënimet
Dhënia e informacioneve shpjeguese financiare: Të gjithë autorët deklarojnë se nuk kanë interesa financiare biomjekësore apo konflikte të mundshme të interesit.
Referencat
1. Wadden TA, Berkowitz RI, Womble LG, Sarver DB, Phelan S, Cato RK, Hesson LA, Osei SY, Kaplan R, Stunkard AJ. Prova e rastësishme e modifikimit të jetesës dhe farmakoterapisë për obezitetin. N Engl J Med. 2005; 353 (20) 2111-20 [PubMed].
2. Blendy JA, Strasser A, Walters CL, Perkins KA, Patterson F, Berkowitz R, Lerman C. Shpërblimi i reduktuar i nikotinës në trashje: krahasimi i tërthortë në njeriun dhe miun. Psikofarmakologjia (Berl) 2005
3. Franken IH, Muris P. Ndryshimet individuale në ndjeshmërinë e shpërblimit lidhen me dëshirën e ushqimit dhe peshën relative të trupit në gratë e shëndetshme. Oreks. 2005; 45 (2) 198-201 [PubMed].
4. Kelley AE, Berridge KC. Neuroscience e shpërblimeve natyrore: rëndësia e drogave Addictive. J Neurosci. 2002; 22 (9) 3306-11 [PubMed].
5. Cagniard B, Balsam PD, Brunner D, Zhuang X. Minjtë me shfaqje kronike të dopaminit kanë rritur motivimin, por jo të mësuarit, për një shpërblim ushqimor. Neuropsychopharmacology. 2006; 31 (7) 1362-70 [PubMed].
6. Liang NC, Hajnal A, Norgren R. Sham ushqyer vaj misri rrit accumbens dopamine në miu. Am J Physiol Regul Integr Kompleksi Physiol. 2006; 291 (5) R1236-9 [PubMed].
7. Mendoza J, Angeles-Castellanos M, Escobar C. Nxjerrja nga një vakt i shijshëm nxit aktivitetin paraprak ushqimor dhe shprehjen c-Fos në fushat që lidhen me shpërblimin e trurit. Neuroscience. 2005; 133 (1) 293-303 [PubMed].
8. Shrëder BE, Binzak JM, Kelley AE. Një profil i përbashkët i aktivizimit kortikal parafrontal pas ekspozimit ndaj cues kontekstuale të lidhura me nikotinë ose me çokollatë. Neuroscience. 2001; 105 (3) 535-45 [PubMed].
9. Nestler EJ, Barrot M, Vetë DW. DeltaFosB: një kalim i qëndrueshëm molekular për varësinë. Proc Natl Acad Sci USA A. 2001; 98 (20): 11042-6. [PMC artikull falas] [PubMed]
10. Teegarden SL, Bale TL. Zvogëlimi i preferencës ushqimore prodhon emocionalitet dhe rrezik për rikthim dietetik. Biol Psikiatria. 2007; 61 (9) 1021-9 [PubMed].
11. Olausson P, Jentsch JD, Tronson N, Nestler EJ, Taylor JR. dFosB në Nucleus Accumbens Rregullon Sjelljen dhe Motivimin Instrumental të Përforcuar nga Ushqimi. Gazeta e Neurosciences. 2006; 26 (36) 9196-9204 [PubMed].
12. Chen J, Kelz MB, Zeng G, Sakai N, Steffen C, Shockett PE, Picciotto MR, Duman RS, Nestler EJ. Kafshët transgjenike me shprehje indicibile të gjenit në tru në tru. Mol Pharmacol. 1998; 54 (3) 495-503 [PubMed].
13. Kelz MB, Chen J, Carlezon WA, Jr, Whisler K, Gilden L, Beckmann AM, Steffen C, Zhang YJ, Marotti L, Vetë DW, Tkatch T, Baranauskas G, Surmeier DJ, Nestler EJ. Shprehja e faktorit të transkriptimit deltaFosB në tru kontrollon ndjeshmërinë ndaj kokainës. Nature. 1999; 401 (6750) 272-6 [PubMed].
14. Bale TL, Dorsa DM. Diferencat gjinore në dhe efektet e estrogjenit në shprehjen e acidit ribonukleik të receptorit të receptorit të oksitocit në hypothalamus ventromedial. Endokrinologji. 1995; 136 (1) 27-32 [PubMed].
15. Avena NM, Long KA, Hoebel BG. Rats të varur nga sheqeri tregojnë se reagimi i rritur për sheqer pas abstinencës është dëshmi e një efekti të deprivimit të sheqerit. Physiol Behav. 2005; 84 (3) 359-62 [PubMed].
16. Do MJ, Franzblau EB, Kelley AE. Nucleus accumbens mu-opioids rregullojnë marrjen e një diete me yndyrë të lartë nëpërmjet aktivizimit të një rrjeti të shpërndarë të trurit. J Neurosci. 2003; 23 (7) 2882-8 [PubMed].
17. Zheng H, Patterson LM, Berthoud HR. Sinjalizimi i Orexin në zonën tegmentale të barkut kërkohet për oreksin e yndyrës të shkaktuar nga stimulimi opioid i bërthamës accumbens. J Neurosci. 2007; 27 (41) 11075-82 [PubMed].
18. Hommel JD, Trinko R, Sears RM, Georgescu D, Liu ZW, Gao XB, Thurmon JJ, Marinelli M, DiLone RJ. Nënshkrimi i receptorit të Leptin në neuronet e dopamenit të midbrain rregullon ushqimin. Neuron. 2006; 51 (6) 801-10 [PubMed].
19. Colby CR, Whisler K, Steffen C, Nestler EJ, Vetë DW. Zmadhimi i tepërt i tipit qelizor striatoz të DeltaFosB rrit nxitjen për kokainë. J Neurosci. 2003; 23 (6) 2488-93 [PubMed].
20. Zachariou V, Bolanos CA, Selley DE, Theobald D, Cassidy MP, Kelz MB, Shaw-Lutchman T, Berton O, Sim-Selley LJ, Dileone RJ, Kumar A, Nestler EJ. Një rol esencial për DeltaFosB në bërthamë accumbens në veprim morfinë. Nat Neurosci. 2006; 9 (2) 205-11 [PubMed].
21. Lee KW, Kim Y, Kim AM, Helmin K, Nairn AC, Greengard P. Prodhimi i shtyllës së dendritit të shkaktuar nga kokaina në receptorët e D1 dhe D2 që përmbajnë receptorët dopaminë që përmbajnë neuronet e mesme të mprehtë në nucleus accumbens. Proc Natl Acad Sci USA A. 2006; 103 (9): 3399-404. [PMC artikull falas] [PubMed]
22. Blendy JA, Maldonado R. Analiza gjenetike e varësisë nga droga: roli i proteinës lidhëse të reagimit të cAMP. J Mol Med. 1998; 76 (2) 104-10 [PubMed].
23. Nestler EJ. Mekanizmat molekularë të varësisë nga droga. Neuropharmacology. 2004; 47 1: 24-32 [PubMed]
24. Tanis KQ, Duman RS, Njutoni SS. Lidhja dhe aktiviteti i CREB në trurin: Specificiteti rajonal dhe induksioni nga sekuestrimi elektrokonvulsiv. Biol Psikiatria. 2007
25. Kumar A, Choi KH, Renthal W, Tsankova NM, Theobald DE, Truong HT, Russo SJ, Laplant Q, Sasaki TS, Whistler KN, Neve RL, Vetë DW, Nestler EJ. Remodeling kromatin është një mekanizëm kyç që bazon plasticitetin e shkaktuar nga kokaina në striatum. Neuron. 2005; 48 (2) 303-14 [PubMed].
26. Graham DL, Edwards S, Bachtell RK, Dileone RJ, Rios M, Vetë DW. Aktiviteti dinamik i BDNF në bërthamë accumbens me përdorimin e kokainës rrit vetë-administrimin dhe rikthimin. Nat Neurosci. 2007; 10 (8) 1029-37 [PubMed].
27. Svenningsson P, Nairn AC, Greengard P. DARPP-32 ndërmjetëson veprimet e drogave të shumta të abuzimit. Hapat J. 2005; 7 (2): E353-60. [PMC artikull falas] [PubMed]
28. Palmer AA, Verbitsky M, Suresh R, Kamens HM, Reed CL, Li N, Burkhart-Kasch S, McKinnon CS, Belknap JK, Gilliam TC, Phillips TJ. Diferencat e shprehjes së gjeneve në minj përzgjidhet divergjenisht për ndjeshmërinë e metamfetaminës. Mamm Genome. 2005; 16 (5) 291-305 [PubMed].
29. Bogush A, Pedrini S, Pelta-Heller J, Chan T, Yang Q, Mao Z, Shluzas E, Gieringer T, Ehrlich ME. AKT dhe CDK5 / p35 ndërmjetësojnë induktimin e faktorit neurotrofik të trurit nga DARPP-32 në neuronet e mesme të mprehtë në vitro. J Biol Chem. 2007; 282 (10) 7352-9 [PubMed].
30. Benavides DR, Bibb JA. Roli i Cdk5 në abuzimin me drogat dhe plasticitetin. Ann NY Acad Sci. 2004; 1025:. 335-44 [PubMed]
31. Bibb JA, Chen J, Taylor JR, Svenningsson P, Nishi A, Snyder GL, Yan Z, Sagawa ZK, Ouimet CC, Nairn AC, Nestler EJ, Greengard P. Efektet e ekspozimit kronik ndaj kokainës rregullohen nga proteina neurone Cdk5. Nature. 2001; 410 (6826) 376-80 [PubMed].
32. Blochl A, Sirrenberg C. Neurotrophins stimulojnë lirimin e dopamines nga neuronet meseskene të miut nëpërmjet receptorëve të Trk dhe p75Lntr. J Biol Chem. 1996; 271 (35) 21100-7 [PubMed].
33. Berton O, McClung CA, Dileone RJ, Krishnan V, Renthal W, Russo SJ, Graham D, Tsankova NM, Bolanos CA, Rios M, Monteggia LM, Vetë DW, Nestler EJ. Roli thelbësor i BDNF në shtegun mesolimbik të dopaminës në stresin e humbjes sociale. Shkenca. 2006; 311 (5762) 864-8 [PubMed].
34. Nestler EJ, Carlezon WA., Jr Mesolimbic dopamine shpërblim qark në depresion. Biol Psikiatria. 2006; 59 (12) 1151-9 [PubMed].
35. Ford CP, Beckstead MJ, Williams JT. Frenimi opioid Kappa i rrymave postinaptike frenuese të dopaminës somatodendritike. J Neurophysiol. 2007; 97 (1) 883-91 [PubMed].
36. Nylander I, Vlaskovska M, Terenius L. Dinorfin i trurit dhe sistemet enkefaline në Fischer dhe Lewis rats: efektet e tolerancës morfine dhe tërheqjes. Brain Res. 1995; 683 (1) 25-35 [PubMed].
37. Nylander I, Hyytia P, Forsander O, Terenius L. Dallimet ndërmjet preferencave të alkoolit (AA) dhe shmangies së alkoolit (ANA) në prodynorphin dhe sistemet proenkefalina. Alkooli Clin Exp Res. 1994; 18 (5) 1272-9 [PubMed].
38. Kreek MJ. Kokaina, dopamina dhe sistemi endogjen opioid. J Addict Dis. 1996; 15 (4) 73-96 [PubMed].
39. Carlezon WA, Jr, Duman RS, Nestler EJ. Fytyrat e shumta të CREB. Trendet Neurosci. 2005; 28 (8) 436-45 [PubMed].
40. Dudman JT, Eaton ME, Rajadhyaksha A, Macias W, Taher M, Barczak A, Kameyama K, Huganir R, Konradi C. Dopamine receptorët D1 ndërmjetësojnë fosforilimin CREB nëpërmjet fosforilimit të receptorit NMDA në Ser897-NR1. J Neurochem. 2003; 87 (4) 922-34 [PubMed].
41. Vetë DW. Rregullimi i sjelljes së drogës dhe ndjekjes së sjelljeve nga neuroadaptimet në sistemin mesolimbik të dopamines. Neuropharmacology. 2004; 47 1: 242-55 [PubMed]
42. Beitner-Johnson D, Nestler EJ. Morfina dhe kokaina ushtrojnë veprime të zakonshme kronike në hidroksilazën e tirosinës në rajonet shpërblim dopaminergjike të trurit. J Neurochem. 1991; 57 (1) 344-7 [PubMed].
43. Lu L, Grimm JW, Shaham Y, Hope BT. Neuroadaptimet molekulare në zonën tegmentale të akumulatorëve dhe barkut gjatë ditëve të para të 90 të abstinencës së detyruar nga vetë-administrimi i kokainës në minjtë. J Neurochem. 2003; 85 (6) 1604-13 [PubMed].
44. Shepard JD, Chuang DT, Shaham Y, Morales M. Efekti i vetë-administrimit të metamfetaminës në nivelet e tirozin hidroksilazës dhe të transportuesit dopamin në rrugët mesolimbike dhe nigrostriatale të dopaminës së miut. Psikofarmacologjia (Berl) 2006; 185 (4): 505-13 [PubMed]
45. Fulton S, Pissios P, Manchon RP, Stiles L, Frank L, Pothos EN, Maratos-Flier E, Flier JS. Rregullimi i leptinit të rrugës dopamane mesoaccumbens. Neuron. 2006; 51 (6) 811-22 [PubMed].
46. Narita M, Nagumo Y, Miyatake M, Ikegami D, Kurahashi K, Suzuki T. Implikimi i proteinës kinazës C në nivelet e nivelit të shtatzënisë dopamine të stimuluar nga oreksina dhe efekti i saj i shpërblyer. Eur J Neurosci. 2007; 25 (5) 1537-45 [PubMed].
47. Narita M, Nagumo Y, Hashimoto S, Khotib J, Miyatake M, Sakurai T, Yanagisawa M, Nakamachi T, Shioda S, Suzuki T. Përfshirja e drejtpërdrejtë e sistemeve oreksinergjike në aktivizimin e rrugës mesolimbike të dopaminës dhe sjelljet e lidhura me morfinë. J Neurosci. 2006; 26 (2) 398-405 [PubMed].
48. Borgland SL, Taha SA, Sarti F, Fushat HL, Bonci A. Orexin A në VTA është kritike për induksionin e plasticitetit synaptik dhe sensibilizimit të sjelljes ndaj kokainës. Neuron. 2006; 49 (4) 589-601 [PubMed].
49. Park ES, Yi SJ, Kim JS, Lee HS, Lee IS, Seong JK, Jin HK, Yoon YS. Ndryshimet në shprehjen orexin-A dhe neuropeptide Y në hypothalamus të ushqimit të agjëruar dhe me yndyrë të lartë të ushqyerit me rats. J Vet Sci. 2004; 5 (4) 295-302 [PubMed].
50. Wortley KE, Chang GQ, Davydova Z, Leibowitz SF. Peptidet që rregullojnë marrjen e ushqimit: ekspresja e oreksin gjen rritet gjatë gjendjeve të hipertrigliceridemisë. Am J Physiol Regul Integr Kompleksi Physiol. 2003; 284 (6) R1454-65 [PubMed].
51. Zheng H, Corkern M, Stoyanova I, Patterson LM, Tian R, Berthoud HR. Peptidet që rregullojnë marrjen e ushqimit: manipulimi i akupunkteve që nxisin oreksin aktivizon neuronet e hypothalamic orexin dhe pengon neuronet POMC. Am J Physiol Regul Integr Kompleksi Physiol. 2003; 284 (6) R1436-44 [PubMed].
52. Baldo BA, Gual-Bonilla L, Sijapati K, Daniel RA, Landry CF, Kelley AE. Aktivizimi i një nënpopullimi të neuroneve hipotalamike që përmbajnë oreksin / hypocretin nga inhibimi i GABAA-mediatorit të shell shell nucleus accumbens, por jo nga ekspozimi ndaj një mjedisi të ri. Eur J Neurosci. 2004; 19 (2) 376-86 [PubMed].
53. Harris GC, Wimmer M, Aston-Jones G. Një rol për neuronet oreksin hypothalamic lateral në kërkimin e shpërblimit. Nature. 2005; 437 (7058) 556-9 [PubMed].