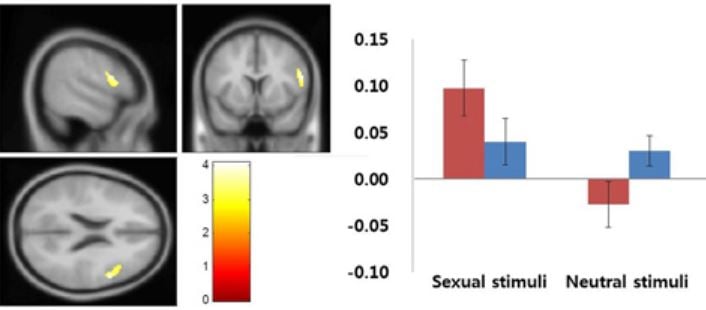
KOMMENTARER: Den här koreanska fMRI-studien replikerar andra hjärnstudier på pornoanvändare. Precis som Cambridge University-studierna fann man cue-inducerad hjärnaktiveringsmönster hos sexmissbrukare som speglade narkotikamissbrukarnas mönster. I linje med flera tyska studier hittade förändringar i prefrontal cortex som matchar de förändringar som observerats hos drogmissbrukare.
Medan den replikerar aspekter av andra studier, lägger det här koreanska dokumentet också till följande:
- Det undersökte ytterligare hjärnregioner involverade i cue-inducerad reaktivitet och fann att alla reagerade med mycket större intensitet än i friska kontroller. Ytterligare hjärnregioner: thalamus, vänster caudatkärna, höger supramarginal gyrus och höger dorsal anterior cingulate gyrus.
- Vad som är nytt är att resultaten perfekt matchade de prefrontala cortexmönstren som observerats hos narkomaner: Större köreaktivitet mot sexuella bilder, men hämmade svaret på andra normala stimuli. I en missbrukare leder signaler relaterade till missbruket till att prefrontal cortex spränger belöningskretsen med "go get it" -signaler. Det resulterar också i mindre spänning som svar på normala vardagliga belöningar. Det vill säga mindre motivation att driva normala belöningar.
Främre. Behav. Neurosci., 30 November 2015
Ji-Woo Seok och Jin-Hun Sohn *
- Institutionen för psykologi, Brain Research Institute, Chungnam National University, Daejeon, Sydkorea
Studier av egenskaperna hos individer med hypersexuell sjukdom har ackumulerats på grund av ökande oro för problematisk hypersexuellt beteende (PHB). För närvarande är relativt lite känt om de bakomliggande beteendemässiga och neurala mekanismerna för sexuell lust. Vår studie syftade till att undersöka de neurala korrelaten av sexuell lust med händelserelaterad funktionell magnetisk resonansavbildning (fMRI). Tjugotre personer med PHB och 22 åldersmatchade friska kontroller skannades medan de passivt betraktade sexuella och icke-sexuella stimuli. Ämnenas nivåer av sexuell lust bedömdes som svar på varje sexuell stimulans. I förhållande till kontroller upplevde individer med PHB mer frekvent och förbättrad sexuell lust under exponering för sexuella stimuli. Större aktivering observerades i kaudatkärnan, underlägsna parietalloben, ryggens främre cingulära gyrus, talamus och den dorsolaterala prefrontala cortexen i PHB-gruppen än i kontrollgruppen. Dessutom skilde sig de hemodynamiska mönstren i de aktiverade områdena mellan grupperna. I överensstämmelse med resultaten av hjärnbildningsstudier av substans- och beteendeberoende uppvisade individer med beteendemässiga egenskaper hos PHB och ökad lust förändrad aktivering i prefrontal cortex och subkortikala regioner. Sammanfattningsvis kommer våra resultat att hjälpa till att karakterisera beteenden och tillhörande neurala mekanismer hos individer med PHB.
Beskrivning
Problematiskt hypersexuellt beteende (PHB) definieras som kontinuerligt deltagande i upprepade sexuella handlingar utan kontroll över överdriven sexuell tvångsmässighet och beteende trots medvetenhet om de associerade negativa resultaten ( Goodman, 1993 ; Carnes, 2001 , 2013 ). De som lider av PHB kan uppleva extrema svårigheter i sina familjerelationer och arbetsprestation. Dessutom löper de större risk att drabbas av sexuellt överförbara sjukdomar eller uppleva oönskade graviditeter från promiskuösa sexuella relationer ( Schneider och Schneider, 1991 ; Kuzma och Black, 2008 ). I USA har 3–6 % av studenterna i samhället och universitetet PHB ( Coleman, 1992 ; Black, 2000 ; Seegers, 2003 ). I Korea har cirka 2 % av alla universitetsstudenter PHB ( Kim och Kwak, 2011 ). På grund av dess höga prevalens och relaterade problem erkänns de associerade riskerna alltmer i samhället i takt med att förekomsten av PHB verkar öka.
Även om allvaret i PHB nu är erkänt, inkluderades det inte i DSM-5 ( American Psychiatric Association, 2013 ). Det pågår debatter om huruvida hypersexuell störning ska klassificeras som en sjukdom; därför finns det ingen konsensus om dess definition, klassificering eller diagnostiska kriterier. Detta återspeglar svårigheterna att fastställa en tydlig klassificeringsstandard på grund av bristen på objektiva och empiriska studier av faktorer relaterade till hypersexuell störning.
Även om klassificeringen av PHB som en sjukdom fortfarande är kontroversiell, har det föreslagits att överdriven sexuell aktivitet bör klassificeras som en kategori av beroendesjukdomar eftersom PHB innefattar symtom som liknar andra former av beroende ( Goodman, 2001 ; Kor et al., 2013 ). Ökad lust är starkt relaterad till de kliniskt relevanta aspekterna av beroendesjukdomar. Bildstudier har visat att funktionen hos hjärnregioner som är involverade i lust är förändrad hos personer med substansberoende ( Garavan et al., 2000 ; Tapert et al., 2003 ; Franklin et al., 2007 ; McClernon et al., 2009 ). Beteendeberoenden, såsom spelande, internetspel och sexuellt beteende, som inte involverar direkt intag av droger, involverar också en ökad lust som verkar vara relaterad till förändrade funktioner i relevanta hjärnregioner ( Crockford et al., 2005 ; Ko et al., 2009 ; Kühn och Gallinat, 2014 ; Voon et al., 2014 ).
Hjärnavbildningsstudier av begär vid substansberoende och beteendemässigt beroende har visat funktionella förändringar i prefrontala cortex (PFC) och subkortikala belöningskretsar hos personer med dessa störningar ( Goldstein och Volkow, 2011 ). I synnerhet har dessa studier identifierat PFC:s nyckelroll i beroende, både genom dess reglering av limbiska belöningsregioner och dess involvering i de motivationsaspekterna av repetitiv substansanvändning och tvångsmässigt beteende. Den störda funktionen hos PFC leder till försämringar i responsinhibering och tillskrivning av salience, såsom tillskrivning av olämpligt överdriven salience till en beroendeframkallande signal, som i substans- och beroendebeteenden, och en minskad lust efter normala givande stimuli ( Goldman-Rakic och Leung, 2002 ; Goldstein och Volkow, 2011 ).
I överensstämmelse med dessa resultat tyder resultaten av en neuroavbildningsstudie på PHB på att individer med PHB har större subjektiv sexuell lust jämfört med friska kontroller och att den ökade lusten är associerad med olika mönster av neurala svar i det dorsala anterior cingulate-ventral striatal-amygdala funktionella nätverket ( Voon et al., 2014 ). I en studie av hjärnstruktur och funktionell konnektivitet visade Kühn och Gallinat (2014) att frekvent pornografisk exponering är associerad med förändrad hjärnstruktur och funktion i PFC-områden och kan leda till en tendens att söka efter nytt och mer extremt sexuellt material.
Dessa studier visar att ökad längtan och de funktionella abnormiteterna som är inblandade i önskan är också inblandade i PHB, även om beteendet i sig inte inducerar neurotoxiska effekter.
Tyvärr är empiriska data om neurala reaktioner associerade med sexuell lust hos individer med PHB otillräckliga. Tidigare studier av hjärnmekanismerna bakom bearbetningen av sexuell lust hos individer med PHB har använt konventionella blockparadigm under funktionell magnetisk resonanstomografi (fMRI) och en relativt långvarig exponering för erotiska stimuli. I studier av sexuell lust verkar presentationstiden vara viktig ur metodologisk synvinkel och på grund av skillnader i informationsbearbetning ( Bühler et al., 2008 ). I blockdesigner är stimuluspresentationens varaktighet förlängd, och förekomsten av kontinuerliga stimuli i ett block är helt förutsägbar ( Zarahn et al., 1997 ). Därför aktiverar blockdesigner sannolikt områden som är associerade med kognitiva processer, såsom ihållande uppmärksamhet, top-down-kontroll och hämning av sexuell upphetsning . Detta kan leda till minskat emotionellt engagemang och därför förändra den underliggande neurala aktiviteten ( Schafer et al., 2005 ). Metodologiskt sett är händelserelaterade designer sämre än konventionella blockdesigner för att detektera aktiverade hjärnområden, medan de är överlägsna för att uppskatta hemodynamisk responsfunktion ( Birn et al., 2002 ).
Därför var syftet med denna studie att
(1) replikera tidigare beteendefynd av ökad sexuell lust hos individer med PHB,
(2) identifiera förändringarna i hjärnans funktion i regioner som är kända för att vara associerade med ökad önskan och
(3) förstår skillnaderna i de hemodynamiska svaren hos hjärnområdena över tid hos individer med PHB genom att använda händelsesrelaterad fMRI.
Vi antydde att individer med PHBs är mer benägna att visa större sexuell lust jämfört med friska kontroller och att hjärnregioner, som PFC och subcortical belöningskretsar, visar förändrad aktivitet och hemodynamiska svar jämfört med friska kontroller.
Metoder
Deltagare
Den föreliggande studien inkluderade 23 heterosexuella manliga deltagare i PHB-gruppen [medelålder = 26.12, standardavvikelse (SD) = 4.11 år] och 22 heterosexuella manliga deltagare i kontrollgruppen (medelålder = 26.27, SD = 3.39 år) . Cirka 70 potentiella deltagare rekryterades från behandlingsanläggningar för problematiskt sexuellt beteende och möten med Sex Addiction Anonymous. Inklusionskriterierna baserades på PHB-diagnoskriterierna från tidigare studier (tabell S1; Carnes et al., 2010 ; Kafka, 2010 ). Exklusionskriterierna var följande: ålder över 45 år eller under 18 år; en allvarlig psykiatrisk störning, såsom alkoholberoende, spelberoende, egentlig depression, bipolär sjukdom eller tvångssyndrom; för närvarande medicinering; en historia av allvarlig huvudskada; homosexualitet; ett kriminellt förflutet; eller obehörighet för bilddiagnostik (dvs. ha en metall i kroppen, svår astigmatism eller klaustrofobi). Läkarna genomförde kliniska intervjuer med alla potentiella deltagare, och en slutlig grupp på 23 män som uppfyllde inklusionskriterierna och inte exklusionskriterierna valdes ut till PHB-gruppen. Till kontrollgruppen valdes 22 deltagare med demografiska egenskaper (ålder, kön, utbildningsnivå och inkomstnivå) som matchade PHB-gruppen. Alla deltagare lämnade skriftliga informerade samtycken efter att innehållet i den aktuella studien hade förklarats för dem. Chungnam National University Institutional Review Board godkände de experimentella och samtycksförfarandena (godkännandenummer: 201309-SB-003-01). Alla deltagare fick ekonomisk ersättning (150 dollar) för sitt deltagande.
Mätinstrument
Deltagarna fyllde i en enkät med frågor om deras demografiska egenskaper och sexuella aktiviteter under de föregående 6 månaderna och standardiserade skalor, såsom Barratt Impulsiveness Scale-11 ( Patton et al., 1995 ), Buss-Perry Aggression questionnaire ( Buss och Perry, 1992 ), Beck Depression Inventory ( Beck et al., 1996 ), Beck Anxiety Inventory ( Beck et al., 1996 ), Sexual Addiction Screening Test-R (SAST-R; Carnes et al., 2010 ) och Hypersexual Behavior Inventory (HBI; Reid et al., 2011 ; Tabell 1 ). Frågorna om sexuellt beteende var ålder för första samlag och nuvarande sexuell relationsstatus. En exklusiv sexuell situation definierades som en relation där endast två individer har samlag exklusivt med varandra. En icke-exklusiv sexuell relation definierades som upprätthållandet av flera sexuella relationer med flera olika sexpartners utan att upprätthålla någon form av intimitet i relationen.
TABELL 1
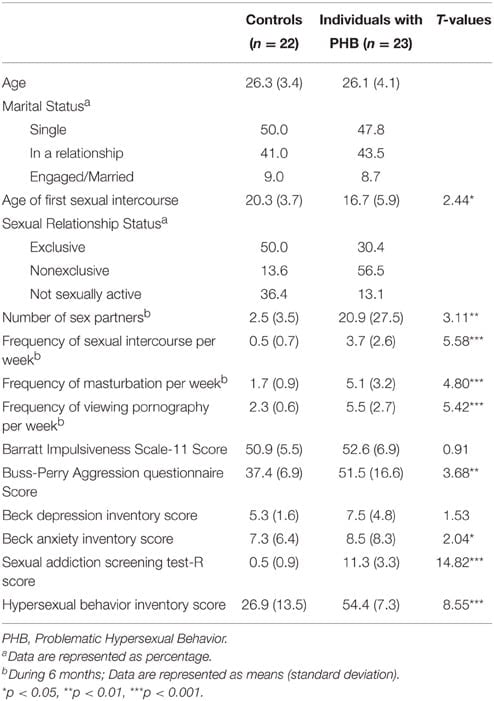
Tabell 1. Ämnesegenskaper.
Frågorna om egenskaper relaterade till sexuell aktivitet inkluderade frekvensen av samlag per vecka, frekvensen av onani per vecka, frekvensen av pornografitittande per vecka och det totala antalet sexpartners under de senaste 6 månaderna . Dessutom användes SAST-R ( Carnes et al., 2010 ) och HBI ( Reid et al., 2011 ) för att bedöma graden av PHB hos deltagarna. SAST-R består av 20 frågor utformade för att bedöma graden av sexuellt beroende. Poängen varierar från 0 till 20 poäng, där högre poäng indikerar ett allvarligare sexuellt beroende. HBI består av 19 frågor och poängen varierar från 19 till 95. En totalpoäng på 53 eller högre indikerar en hypersexuell störning . De interna konsistenserna (Cronbachs α-koefficient) för SAST-R och HBI är 0.91 respektive 0.96 ( Carnes et al., 2010 ; Reid et al., 2011 ).
Experimentella Stimuli och Experimental Paradigm
En förstudie genomfördes på 130 män med normala sexuella funktioner som inte deltog i fMRI-experimentet för att välja ut sexuella och icke-sexuella stimuli för fMRI-studien (File S1). De visuella stimuli bestod av 20 foton som samlats in från International Affective Picture System (6 foton; Lang et al., 2008 ) och webbplatser (14 foton). De sexuella stimuli bestod av fotografier som föreställde nakna kvinnor och sexuell aktivitet. Dessutom valdes 20 foton som inte framkallade någon sexuell lust som icke-sexuella stimuli. De matchades med de sexuella stimuli för deras nivå av behaglighet. De icke-sexuella stimuli visade mycket upphetsande scener, såsom vattensportaktiviteter, firande av en seger och skidåkning. Dessa stimuli valdes för att identifiera den hjärnaktivitet som enbart var relaterad till sexuell lust genom att utesluta aktivitet som var ett resultat av känslor av behaglighet och allmän upphetsning.
För det experimentella fMRI-paradigmet gavs korta instruktioner om experimentet i 6 sekunder i början av experimentet, vilket följdes av slumpmässig presentation av antingen sexuella eller icke-sexuella stimuli i 5 sekunder vardera . Varje interstimulusintervall var 7–13 sekunder (medelvärde 10 sekunder) för att hjälpa deltagaren att återgå till sitt utgångsläge. För att hålla deltagarna fokuserade på stimuli ombads de att trycka på svarsknappen när ett oväntat mål presenterades i cirka 500 ms totalt 12 gånger under ett intervall. Den totala tiden som krävdes för experimentet var 8 minuter och 48 sekunder (Figur 1 ).
BILD 1
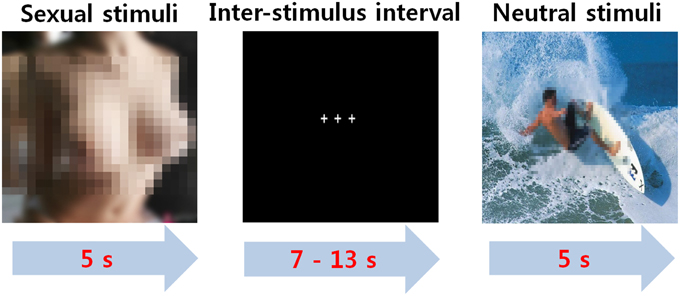
Figur 1. Det händelserelaterade paradigmet för sexuell lust.
Efter att ha slutfört fMRI-experimentet tittade deltagarna på samma stimuli som presenterades i fMRI-experimentet, och de var ombedda att svara på följande tre frågor för en psykologisk bedömning.
Först blev de ombedda att svara "ja" eller "nej" när de frågade om de kände sexuell lust när de visualiserade varje stimulans.
För det andra var de skyldiga att betygsätta sin sexuella önskan på en fempunkts Likert-skala som sträcker sig från 1 (minst intensiv) till 5 (mest intensiv).
För det tredje bestämdes deltagarnas subjektiva betyg på dimensionerna av valens och upphetsning för varje stimulus enligt en sju-punkts Likert-skala.
Betygen formulerades i två dimensioner. Valence, som var positiv eller negativ, varierade från mycket negativ vid 1 till mycket positiv vid 7, och emotionell upphetsning varierade från lugn vid 1 till upphetsad / väckt vid 7. Slutligen var deltagarna skyldiga att rapportera alla andra känslor som de upplevde förutom sexuell lust under deras exponering för varje stimulans.
Bildförvärv
Bildtagning utfördes med en 3.0 T Philips magnetisk resonansskanner (Philips Healthcare, Best, Nederländerna). En enkelbilds-ekoplanär fMRI-skanningsmetod [avbildningsvariabler: repetitionstid (TR) = 2 000 ms, ekotid (TE) = 28 ms, skivtjocklek = 5 mm utan mellanrum, matris = 64 × 64, synfält (FOV) = 24 × 24 cm, vändvinkel = 80° och planupplösning = 3.75 mm] användes för att ta 35 kontinuerliga skivor av blodsyreberoende (BOLD) bilder. T1-viktade anatomiska bilder erhölls med en 3-dimensionell vätskeförsvagad inversionsåterställningssekvens ( TR = 280, TE = 14 ms, vändvinkel = 60°, FOV = 24 × 24 cm, matris = 256 × 256 och skivtjocklek = 4 mm).
Statistiska analyser
För att undersöka de beteendemässiga och neurala reaktioner som enbart baserades på sexuell lust, exkluderades avbildnings- och psykologiska data för de tre bilderna som framkallade andra känslor, såsom avsky, ilska eller förvåning, utöver sexuell upphetsning, från dataanalysen. Oberoende t -tester av frekvenser och intensiteter av sexuell lust mellan de två grupperna utfördes med SPSS 22 (IBM Corporation, Armonk, NY, USA). Frekvensen av sexuell lust betraktades som antalet stimuli för vilka varje deltagare upplevde sexuell lust bland de totalt 20 sexuella stimuli, och intensiteten av sexuell upphetsning var den genomsnittliga nivån av subjektiv sexuell lust för de 20 erotiska bilderna.
SPM8 (Wellcome Department of Imaging Neuroscience, London, Storbritannien) användes för att analysera fMRI-data. I förbehandlingsstadiet utfördes MRI-bildförvärv i följande ordning: skivningstidskorrigering för interleaved förvärv, rörelsekorrigering och rumlig normalisering på en standardmall som tillhandahålls av Montreal Neurological Institute (MNI). Därefter jämnades de normaliserade bilderna med en 8-mm gausskärna.
Efter att förbehandlingen avslutats skapades designmatriser med två villkor (sexuellt tillstånd och icke-sexuellt tillstånd) för varje deltagare för att identifiera områdena med aktivering relaterad till sexuell lust. Individuella analyser på första nivån av jämförelserna av sexuellt tillstånd minus icke-sexuellt tillstånd användes för en slumpmässig effektanalys, och medelvärdesbilder skapades för varje försöksperson. En-stickprovs t- test på medelvärdesbilderna användes för att bedöma de signifikanta gruppeffekterna i varje grupp i de kontrastbilder som skapades i de individuella analyserna. Två-stickprovs t- test utfördes för att identifiera skillnaderna mellan de två grupperna för hjärnresponserna i det sexuella tillståndet i förhållande till det icke-sexuella tillståndet. Dessutom genomfördes korrelationsanalyser endast i PHB-gruppen för att bestämma de aktiveringsregioner som korrelerade med svårighetsgraden av hypersexualitet enligt SAST-R. Eftersom variansen i frågeformulärets poäng kan ha varit för låg för att avslöja mer signifikanta korrelationer i kontrollgruppen, utfördes inte korrelationsanalyser i kontrollgruppen. P-värden mindre än 0.05 (False Discovery Rate, korrigerad, klusterstorlek ≥ 20) eller 0.001 (okorrigerad, klusterstorlek ≥ 20) ansågs vara signifikanta för hjärnaktivitet eftersom dessa nivåer är allmänt accepterade i fMRI-studier. Alla koordinater för de aktiverade voxlarna visas som MNI-koordinater i tabellerna 3 och 4.
Den procentuella signalförändringen extraherades från Regions of Interest (ROI) baserat på resultaten av analyserna mellan grupperna och korrelationsanalyserna [dvs. bilateral thalamus, höger dorsolaterala prefrontala cortex (DLPFC), vänster nucleus caudatus, höger supramarginal gyrus och höger dorsal anterior cingulate gyrus] med MarsBaR ( http://www.sourceforge.net/projects/marsbar ). ROI:erna skapades genom att placera en 5 mm sfär runt koordinaterna som rapporteras i tabellerna 3 och 4. För att undersöka de tidsmässiga egenskaperna hos de hemodynamiska svaren extraherades även BOLD-signaltidsförloppet från ROI:erna under presentationen av varje sexuell stimulus (totalt 12 s; 5 s och 7 s därefter) för alla deltagare . Tidsförloppen beräknades sedan i genomsnitt för deltagarna i varje grupp.
Som ett uppföljningstest av korrelation för att beräkna korrelationskoefficienten analyserades sambanden mellan poängen på SAST-R och HBI och de procentuella signalförändringarna i ROI:erna baserat på resultaten av korrelationsanalysen (tabell 4 ) i PHB-gruppen med SPSS 22.
Resultat
Resultat av de psykologiska bedömningarna
Av de 20 friska kontrollpersonerna rapporterade bara två andra känslor förutom sexuell upphetsning som svar på de tre sexuella stimuli. En deltagare i kontrollgruppen rapporterade att två sexuella stimuli bland 20-sexuella stimuli orsakade avsky och ilska, medan den andra deltagaren i kontrollgruppen bedömde att en sexuell bild gav upphov till överraskning. De tre sexuella bilderna som orsakade andra känslor än sexuell upphetsning uteslutes från dataanalysen.
En oberoende t-test indikerade inga gruppskillnader i dimensionerna av valens och upphetsning som svar på sexuella signaler [valence: t(43) = 0.14, p> 0.05, Cohens d = 0.042; upphetsning: t(43) = 0.30,p> 0.05, Cohens d = 0.089]. Dessutom, andelen sexuella stimuli bland 20 erotiska bilder som framkallade sexuell lust svisade att PHB-gruppen kände sexuell lust oftare än kontrollgruppen under exponering för sexuell stimulansjag [t(43) = 3.23, p <0.01, Cohen's d = 0.960]. Than intensitet av sexuell upphetsning visade att PHB-gruppen upplevde mer intensiv sexuell upphetsning än kontrollgruppen som svar på sexuellt stimulerande foton [t(43) = 14.3, p <0.001, Cohen's d = 4.26]. Resultaten av de psykologiska bedömningarna visas i tabell 2.
TABELL 2
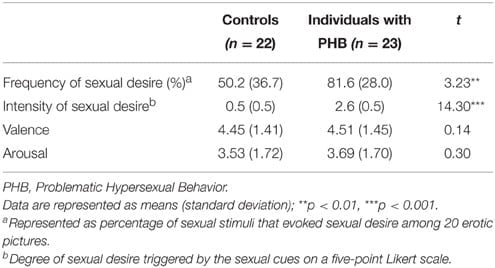
Tabell 2. Resultat av psykologisk bedömning.
fMRI-resultat
I PHB-gruppen observerades aktivering i de bilaterala mellersta/inferiora frontala gyri [Brodmann-området (BA) 9], cuneus/precuneus (BA 7, 18 och 19), striatum, thalamus och cingulära gyri (BA 24 och 32) som svar på sexuella stimuli jämfört med icke-sexuella stimuli. I kontrollgruppen visades aktivering i de bilaterala mellersta/inferiora frontala gyri (BA 9), cuneus/precuneus (BA 7, 18 och 19), striatum, thalamus och vänster cingulära gyrus (BA 24) (korrigerad False Discovery Rate, p < 0.05).
I analysen mellan grupperna uppvisade PHB-gruppen större aktivering i höger dorsala främre cingulära cortex (dACC; BA 24 och 32), bilateral thalamus, vänster nucleus caudatus, höger DLPFC (BA 9, 46) och höger supramarginal gyrus (BA 40) i förhållande till aktiveringen i kontrollgruppen under exponering för sexuella stimuli jämfört med icke-sexuella stimuli. Inga hjärnregioner i kontrollgruppen visade större aktivering än i PHB-gruppen . Alla koordinater för de aktiverade voxlarna visas som MNI-koordinater i tabellerna 3 och 4. Figur 2 visar de procentuella signalförändringarna i kontroll- och PHB-grupperna under varje experimentellt tillstånd (det vill säga sexuella och icke-sexuella tillstånd) för de valda ROI:erna, och figur 3 visar den genomsnittliga tidsserien för varje grupp av de procentuella signalförändringarna vid varje tidpunkt i ROI:erna under presentationen av varje sexuell stimulus (totalt 12 s; 5 och 7 s därefter) baserat på resultaten av analysen mellan grupperna.
TABELL 3
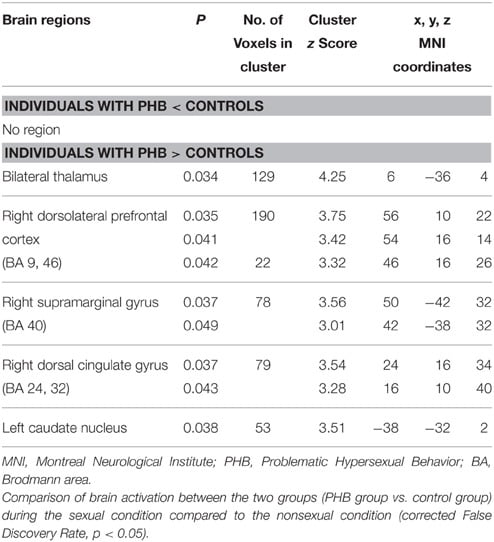
Tabell 3. Hjärnregioner identifierade genom gruppanalysen.
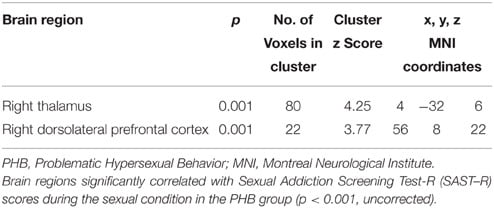
Tabell 4. Hjärnregioner identifierade i korrelationsanalysen i PHB-gruppen under exponering för sexuella stimuli.
BILD 2
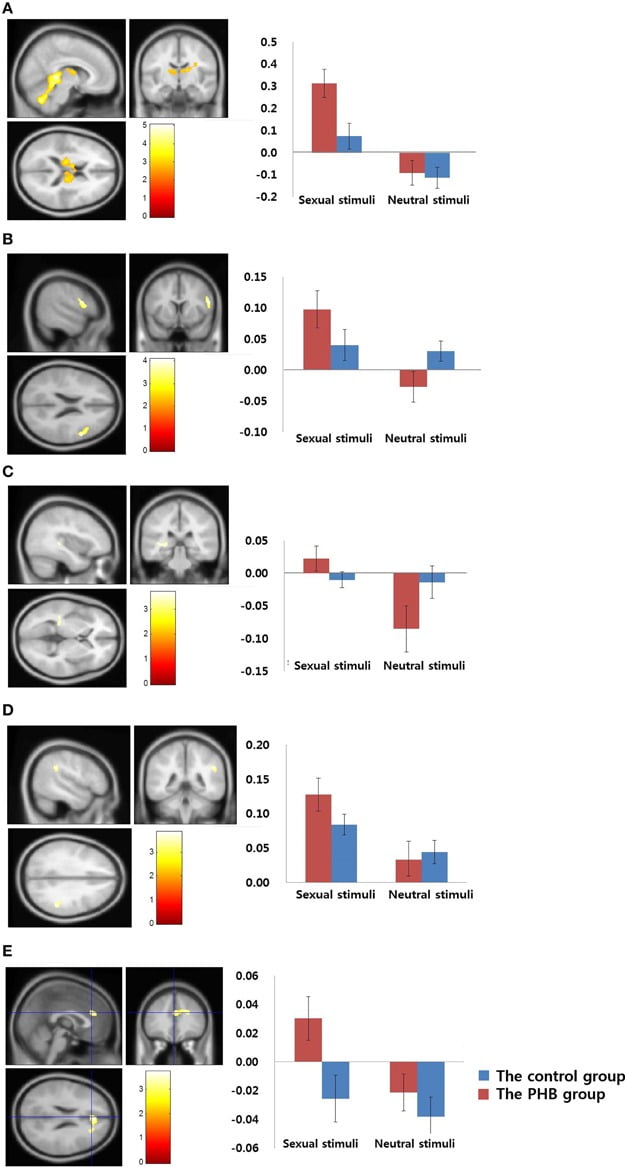
Figur 2. Resultat av mellangruppsanalysen. (A) Bilateral talamus (MNI-koordinat; x = 6, y = -36, z = 4) (B) Höger dorsolateral prefrontal cortex (MNI koordinat;x = 56, y = 10, z = 22) (C) Vänster caudatkärna (MNI-koordinat; x = -38, y = -32, z = 2)(D) Höger supramarginal gyrus (MNI-koordinat; x = 50, y = -42, z = 32) (E) Höger dorsal anterior cingulate gyrus (MNI koordinat; x = 24, y = -16, z = 34). Resultat av jämförelser av aktivering i sexuella stimuli minus icke-sexuella stimuli mellan PHB och kontrollgrupper (p <0.05, Falsk upptäckt, korrigerad). Kontrollgruppen och PHB-gruppen representeras som blå respektive röd. Y-axeln visar procentuell signalförändring och felstaplarna representerar standardfelet för medelvärdet.
BILD 3
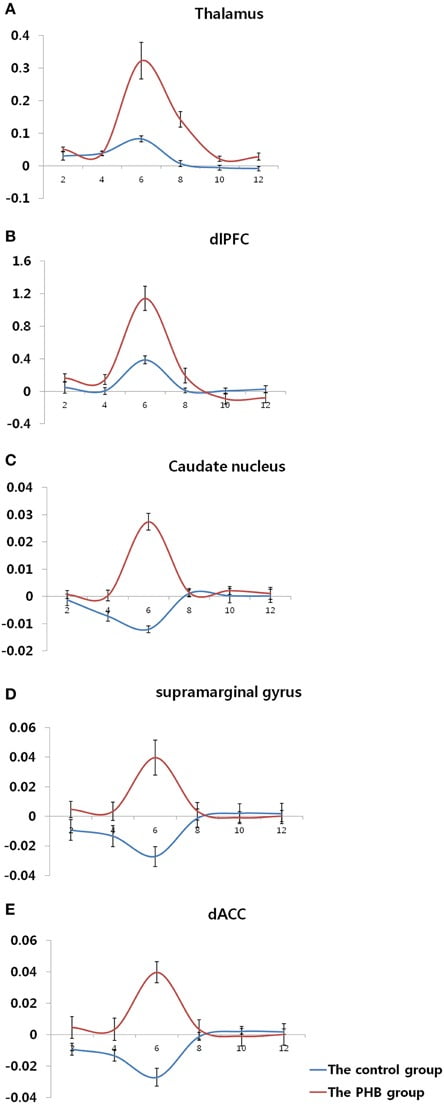
Figur 3. Tidskurs för de hemodynamiska svaren i varje region av intresse.(A) Bilateral talamus (MNI-koordinat; x = 6, y = -36, z = 4) (B) Höger dorsolateral prefrontal cortex (MNI koordinat; x = 56, y = 10, z = 22) (C) Vänster caudatkärna (MNI-koordinat; x = -38, y = -32, z = 2) (D) Höger supramarginal gyrus (MNI-koordinat; x = 50, y = -42, z = 32) (E) Höger dorsal anterior cingulate gyrus (MNI koordinat; x = 24, y = -16, z = 34). Y-axeln och x-axeln visar procentuell signalförändring och tid (er), respektive felstängerna representerar standardfelet för medelvärdet.
Korrelationsanalysen av de regioner som var relaterade till SAST-R-värdet visade att rätt thalamus och DLPFC (BA 9) korrelerades med SAST-R-poängen (p <0.001, okorrigerad) i PHB-gruppen under exponeringen för sexuella stimuli, som visas i tabell 4. Tresultaten av uppföljningsanalysen visade att procentuell signalförändring som extraherades från den högra thalamusen och DLPFC korrelerade signifikant med svårighetsgraden av hypersexualitet, såsom visas i figuren 4. Den procentuella signalen ändras i rätt talamus och rätt DLPFC korreleras positivt med SAST-R-poängen i PHB-gruppen under exponering för sexuella stimuli (höger thalamus: r = 0.74, n = 23, p <0.01; rätt DLPFC: r = 0.63, n = 23, p <0.01). Dessutom var procentuella signalförändringar i rätt DLPFC och höger thalamus positivt relaterade till HBI-poängen i PHB-gruppen (höger thalamus: r = 0.65, n = 23, p <0.01; rätt DLPFC: r = 0.53, n = 23, p <0.01), såsom visas i figur 4.
BILD 4
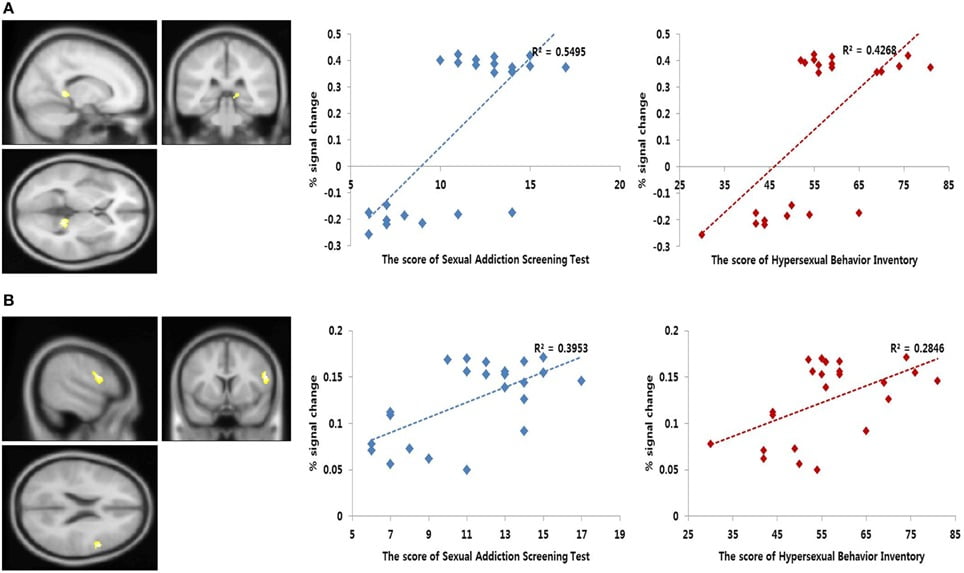
Figur 4. Resultat av korrelationsanalysen . Vänster, korrelationsanalys av funktionell magnetisk resonanstomografi (fMRI). De regioner som visar signifikant korrelation mellan hjärnaktiviteten under sexuell lust och poäng från Sexual Addiction Screening Test-R (SAST-R) ( p < 0.001, okorrigerad). Höger, linjärt samband mellan de procentuella signalförändringarna extraherade från varje område och poäng för sexuell svårighetsgrad [dvs. SAST-R och Hypersexual Behavior Inventory (HBI)]. X-axeln visar poängen för sexuell svårighetsgrad och y-axeln representerar den procentuella signalförändringen. (A) Bilateral talamus (MNI-koordinat; x = 4, y = −32, z = 6) (B) Höger dorsolateral prefrontal cortex (MNI-koordinat; x = 56, y = 8, z = 22).
Diskussion
I den föreliggande studien undersöktes om det fanns en skillnad i nivåerna av sexuell lust mellan individer med PHB och friska kontrollpersoner, och i så fall om denna skillnad var relaterad till funktionella förändringar i de neurala substraten för sexuell lust hos dessa individer. Som förutspått uppvisade PHB-gruppen signifikant förhöjda nivåer av sexuell lust och förändrad aktivering i PFC och subkortikala områden jämfört med kontrollpersoner. Dessa resultat tyder på att de funktionella förändringarna i de neurala kretsar som medierar signalinducerad lust efter sexuellt beteende liknade de som svar på signalpresentation hos individer med substansberoende eller beteendemässigt beroende ( Garavan et al., 2000 ; Tapert et al., 2003 ; Crockford et al., 2005 ; Franklin et al., 2007 ; Ko et al., 2009 ; McClernon et al., 2009 ). Voon et al. (2014) rapporterade onormal lust och funktionella förändringar i regioner associerade med ökad lust hos individer med tvångsmässigt sexuellt beteende. Vi replikerade och utökade dessa resultat genom att undersöka tidsserierna för aktiveringen under de totala 12 sekunderna i de områden som är associerade med sexuell lust.
Som hypotesen antogs visade analyserna av resultaten av de psykologiska bedömningarna att PHB-gruppen uppvisade mer frekvent sexuell lust än kontrollgruppen under exponering för sexuella stimuli, vilket tyder på att denna grupp hade en lägre tröskel för sexuell lust. När sexuell lust framkallades uppvisade PHB-gruppen en högre intensitet av sexuell lust än kontrollgruppen. Detta resultat överensstämde med tidigare fynd om individer med PHB-gruppen ( Laier et al., 2013 ; Laier och Brand, 2014 ; Voon et al., 2014 ), vilket särskilt visar att begäret efter pornografi kan spela en nyckelroll i cybersexberoende.
Resultaten av hjärnans reaktioner på sexuella stimuli stämmer väl överens med tidigare neuroavbildningsfynd som indikerade att aktivitet observeras i de hjärnregioner som är involverade i sexuell lust eller motivation/förväntan, såväl som sexuell behag eller upphetsning/fullbordan, när alla deltagare exponeras för sexuell stimuli ( Georgiadis och Kringelbach, 2012 ). Resultaten av gruppjämförelserna av hjärnavbildningen avslöjade förändrad aktivering i höger DLPFC (BA 9) och subkortikala regioner, inklusive höger dACC (BA 24 och 32), vänster nucleus caudatus, höger supramarginal gyrus (BA 40) och höger thalamus, och dessa förändringar kan vara associerade med PHB-gruppens beteendemässiga egenskaper. Förutom hjärnaktivering undersökte vi en tidsserie av de hemodynamiska reaktionerna i dessa områden under och efter upphetsningen av sexuell lust i dessa områden.
Bland dessa regioner antas vänster nucleus caudatus och höger ACC (BA 24 och 32) samt höger DLPFC vara associerade med den motivationsmässiga komponenten av sexuell lust. Nucleus caudatus engagemang i motivation och belöningsbearbetning kan förklara dess respons på sexuella stimuli ( Delgado, 2007 ). Det dorsala striatum aktiveras under belöningsförväntan ( Delgado, 2007 ), vilket möjligen återspeglar den lust som är associerad med sådan förväntan. I en studie av de neurala reaktionerna i samband med pornografikonsumtion kan frekvent aktivering som ett resultat av pornografiexponering resultera i nedslitning och nedreglering av striatum, inklusive nucleus caudatus, hos friska kontroller ( Kühn och Gallinat, 2014 ). I den aktuella studien observerades dock större aktivering i nucleus caudatus i PHB-gruppen, även om PHB-gruppen tittade på pornografi oftare . Dessa skillnader mellan resultaten från den aktuella studien och de från Kühn och Gallinat (2014) kan förklaras av skillnaden i deltagarna. Det vill säga, i motsats till användningen av friska vuxna män i den tidigare studien, genomfördes vår studie på individer med PHB. Ackumulerande bevis tyder på att nucleus caudatus är viktig för inlärning av stimulus-respons-vanor och upprätthållande av beroendeframkallande beteende ( Vanderschuren och Everitt, 2005 ). Aktiveringen av nucleus caudatus i denna studie kan tyda på att sexuell signalreaktivitet etableras efter upprepad exponering för sexuella erfarenheter.
DACC är känt för att vara relaterat till motivationsmekanismerna för sexuell lust (Redouté et al., 2000; Arnow et al., 2002; Hamann et al., 2004; Ferretti et al., 2005; Ponseti et al., 2006; Paul et al., 2008). Våra resultat av dACC-aktivering tyder på att det har en roll i sexuell lust, och dessa resultat liknade dem i en studie om lustrelaterad neural aktivitet hos personer med tvångssyndrom (Voon et al., 2014). Dessutom är dACC känt för att vara viktigt vid den första behandlingen av målorienterat beteende genom att engagera sig i konfliktövervakning mellan uppmaningen till beteendeuttryck och undertryckandet av denna uppmaning (Devinsky et al., 1995; Arnow et al., 2002;Karama et al., 2002; Moulier et al., 2006; Safron et al., 2007). Neuroanatomically projekterar dACC till DLPFC och parietal lobe (Devinsky et al., 1995; Pizzagalli et al., 2001). I denna studie kan aktiveringen i dACC i PHB-gruppen återspegla den interna konflikten mellan strävan att uttrycka sexuella impulser som handlingar och uppmaningen att undertrycka impulserna på grund av situativa faktorer vid presentationen av sexuella stimuli.
Aktiveringen av den supramarginala gyrusen är förknippad med ökad uppmärksamhet på måltavlor som uppfattas som sexuella signaler ( Redouté et al., 2000 ; Stoléru et al., 2012 ). Tidigare studier har föreslagit att den ökade uppmärksamheten på sexuella stimuli spelar en viktig roll för att upprätthålla sexuell lust ( Barlow, 1986 ; Janssen och Everaerd, 1993 ) och är relaterad till sökande efter sexuella sensationer ( Kagerer et al., 2014 ). I den aktuella studien skulle den supramarginala aktiveringen kunna återspegla den större uppmärksamhet som PHB-personer ägnade sexuella stimuli och det skulle kunna resultera i högre nivåer av sexuell lust jämfört med kontrollgruppen.
Bland de regioner som var signifikant aktiverade i resultaten mellan grupperna, korrelerade DLPFC och talamus direkt med svårighetsgraden av sexuellt beroende hos PHB-patienterna. Vi observerade större talamusaktivering, vilket var i linje med tidigare resultat från studier om sexuell upphetsning ( Redouté et al., 2000 ; Moulier et al., 2006 ). Enligt tidigare studier om sexuell lust är aktiveringen av talamus relaterad till de fysiologiska svaren (dvs. beredskap för sexuell aktivitet) som induceras av sexuell lust och är positivt korrelerad med penisektion ( MacLean och Ploog, 1962 ; Redouté et al., 2000 ; Moulier et al., 2006 ). Intressant nog fann vi också ett högre och bredare hemodynamiskt mönster i talamus jämfört med kontrollgruppen. Detta högre och bredare hemodynamiska respons kan indikera att sexuell upphetsning var starkare och förlängd hos individerna med PHB.
I likhet med resultaten från studier om neural aktivitet hos individer med beroende under signalinducerad begär, fann vi förändrad PFC-funktion i PHB-gruppen. PFC spelar en avgörande roll i framtida planering och arbetsminne ( Bonson et al., 2002 ). Neuroanatomiskt är PFC sammankopplat med olika områden, inklusive dACC, nucleus caudatus och parietalloben ( Devinsky et al., 1995 ; Pizzagalli et al., 2001 ; Goldman-Rakic och Leung, 2002 ). Tidigare studier om beroende har visat att dysfunktion i detta nätverk, inklusive PFC, är relaterat till PFC:s reglering av limbiska belöningsregioner och dess involvering i högre ordningens exekutiva funktioner, inklusive självkontroll, salienceattribution och medvetenhet ( Goldman-Rakic och Leung, 2002 ; Feil et al., 2010 ; Goldstein och Volkow, 2011 ; Kühn och Gallinat, 2014 ). I synnerhet har dessa studier identifierat den störda funktionen hos DLPFC som en försämring av salienceattributionen, vilket resulterar i symtom, såsom onormalt ökad känslighet för en beroendeframkallande signal som i substans- och beroendebeteenden och minskat intresse för normalt-belönande stimuli ( Goldman-Rakic och Leung, 2002 ; Goldstein och Volkow, 2011 ). I den aktuella studien kan observationen av större DLPFC-aktivering i PHB-gruppen jämfört med kontrollgruppen återspegla överdriven salienceattribution till sexuella signaler.
Sammanfattningsvis uppvisade PHB-gruppen större sexuell lust som var förknippad med förändrad hjärnaktivitet. Dessa fynd tyder på att PHB-gruppen kan ägna överdriven uppmärksamhet åt sexuella stimuli och att den kan ha en automatisk respons eftersom det villkorliga svaret på sexuella stimuli inte kunde medieras korrekt. Begränsningarna i den aktuella studien var följande. För det första var försökspersonernas etnicitet asiatisk. För det andra omfattade denna studie endast heterosexuella manliga försökspersoner, och framtida studier som involverar kvinnor och homosexuella manliga försökspersoner bör vara till hjälp för att bättre förstå PHB. PHB-försökspersoner med samtidiga psykiska störningar inkluderades inte i den aktuella studien, vilket säkerställer att undersökningen av neural dysfunktion enbart baserad på PHB. Enligt en studie av Weiss (2004) lider dock 28 % av männen med PHB av egentlig depression. Sammantaget begränsar dessa faktorer generaliserbarheten av studieresultaten till den bredare universella populationen. Slutligen kan de två grupperna ha skiljt sig åt med avseende på självkännedom och/eller emotionell känslighet på grund av behandlingen av PHB-deltagarna. Vi försökte minska skillnaderna mellan kontroll- och PHB-grupperna genom att matcha viktiga demografiska variabler, inklusive ålder, utbildningsnivå och handrätthet, för jämförelseändamål och genom att tillämpa strikta exklusionskriterier, såsom förekomst av psykiatriska störningar och aktuell användning av psykotropa läkemedel, på båda grupperna. Därefter planerar vi att undersöka hur variabler som är relaterade till behandlingsperiod eller behandlingstyp påverkar de emotionella reaktionerna, inklusive reaktioner på sexuella signaler, hos individer med PHB.
Trots dessa begränsningar bidrar resultaten av denna studie väsentligt till litteraturen och har betydande konsekvenser för framtida forskning. Vi identifierade specifika hjärnregioner som var direkt förknippade med sexuell lust och de tidsmässiga förändringarna i verksamheten i dessa regioner bland patienter med PHB. Liksom hjärnbildningsstudier om substans- och beteendeberoende, var PHB relaterat till funktionella förändringar i PFC och subkortiska områden, även utan neurotoxicitet av droger. Våra resultat är därför användbara för att karakterisera beteenden och tillhörande neurala mekanismer hos individer med PHB, och gå ett steg bortom beskrivningarna av egenskaper som i tidigare studier.
Finansiering
Detta arbete stöddes av Korea Basic Science Institute (No. E35600) och forskningsfond av 2014 Chungnam National University.
Intresseanmälan
Författarna förklarar att forskningen genomfördes i avsaknad av kommersiella eller finansiella relationer som kan tolkas som en potentiell intressekonflikt.
Erkännanden
Författarna skulle vilja tacka Korea Basic Science Institute för att tillåta denna studie att genomföras på Department of Human Imaging Center med hjälp av 3T MRI-skanner (Phillips).
Extramaterial
Kompletterande material till den här artikeln finns online på: http://journal.frontiersin.org/article/10.3389/fnbeh.2015.00321
Referensprojekt
Amerikanska psykiatriska föreningen (2013). Diagnostisk och statistisk manual för psykiska störningar, 5:e uppl . Arlington, VA: American Psychiatric Publishing.
Arnow, BA, Desmond, JE, Banner, LL, Glover, GH, Solomon, A., Polan, ML, et al. (2002). Hjärnaktivering och sexuell upphetsning hos friska, heterosexuella män. Brain 125, 1014–1023. doi: 10.1093/brain/awf108
Barlow, DH (1986). Orsaker till sexuell dysfunktion: ångestens och kognitiva störningars roll. J. Consult. Clin. Psychol . 54, 140–148. doi: 10.1037/0022-006X.54.2.140
Beck, AT, Steer, RA och Brown, GK (1996). Beck Depression Inventory-II . San Antonio, TX: Psychological Corporation.
Birn, RM, Cox, RW, och Bandettini, PA (2002). Detektion kontra uppskattning i händelserelaterad fMRI: val av optimal stimulustidpunkt. Neuroimage 15, 252–264. doi: 10.1006/nimg.2001.0964
Black, DW (2000). Epidemiologi och fenomenologi för tvångsmässigt sexuellt beteende. CNS Spectr. 5, 26–72. doi: 10.1017/S1092852900012645
Bonson, KR, Grant, SJ, Contoreggi, CS, Links, JM, Metcalfe, J., Weyl, HL, et al. (2002). Neurala system och kokainbegär orsakat av signalämnen. Neuropsychopharmacology 26, 376–386. doi: 10.1016/S0893-133X(01)00371-2
Bühler, M., Vollstädt-Klein, S., Klemen, J., och Smolka, MN (2008). Påverkar presentationsdesignen för erotiska stimuli hjärnans aktiveringsmönster? Händelserelaterade vs. blockerade fMRI-designer. Behav. Brain Funct. 4:30. doi: 10.1186/1744-9081-4-30
Buss, AH, och Perry, M. (1992). Aggressionsformuläret. J. Pers. Soc. Psychol. 63, 452–459. doi: 10.1037/0022-3514.63.3.452
Carnes, P. (2013). I motsats till kärlek: Att hjälpa sexmissbrukare . Center City, MN: Hazelden Publishing.
Carnes, P., Green, B., och Carnes, S. (2010). Samma men ändå annorlunda: att omfokusera screeningtestet för sexuellt beroende (SAST) för att återspegla läggning och kön. Sex. Addict. Compuls. 17, 7–30. doi: 10.1080/10720161003604087
Carnes, PJ (2001). Ut ur skuggorna: Att förstå sexuellt beroende . Center City, MN: Hazelden Publishing.
Coleman, E. (1992). Lider din patient av tvångsmässigt sexuellt beteende? Psychiatr. Ann. 22, 320–325. doi: 10.3928/0048-5713-19920601-09
Crockford, DN, Goodyear, B., Edwards, J., Quickfall, J., och el-Guebaly, N. (2005). Ledtrådsinducerad hjärnaktivitet hos patologiska spelare. Biol. Psychiatry 58, 787–795. doi: 10.1016/j.biopsych.2005.04.037
Delgado, MR (2007). Belöningsrelaterade reaktioner i det mänskliga striatumet. Ann. NY Acad. Sci. 1104, 70–88. doi: 10.1196/annals.1390.002
Devinsky, O., Morrell, MJ, och Vogt, BA (1995). Bidrag från främre cingulära cortex till beteende. Brain 118, 279–306. doi: 10.1093/brain/118.1.279
Feil, J., Sheppard, D., Fitzgerald, PB, Yücel, M., Lubman, DI, och Bradshaw, JL (2010). Beroende, tvångsmässigt drogsökande och frontostriatala mekanismers roll i regleringen av hämmande kontroll. Neurosci. Biobehav. Rev. 35, 248–275. doi: 10.1016/j.neubiorev.2010.03.001
Ferretti, A., Caulo, M., Del Gratta, C., Di Matteo, R., Merla, A., Montorsi, F., et al. (2005). Dynamik av manlig sexuell upphetsning: distinkta komponenter i hjärnaktivering avslöjade av fMRI. Neurobild 26, 1086–1096. doi: 10.1016/j.neuroimage.2005.03.025
Franklin, TR, Wang, Z., Wang, J., Sciortino, N., Harper, D., Li, Y., et al. (2007). Limbisk aktivering av cigarettrökningssignaler oberoende av nikotinabstinens: en perfusions-fMRI-studie. Neuropsychopharmacology 32, 2301–2309. doi: 10.1038/sj.npp.1301371
Garavan, H., Pankiewicz, J., Bloom, A., Cho, JK, Sperry, L., Ross, TJ, et al. (2000). Kokaininducerat begär: neuroanatomisk specificitet för drogmissbrukare och drogstimuli. Am. J. Psychiatry 157, 1789–1798. doi: 10.1176/appi.ajp.157.11.1789
Georgiadis, JR, och Kringelbach, ML (2012). Den mänskliga sexuella responscykeln: hjärnavbildningsbevis som kopplar sex till andra njutningar. Prog. Neurobiol. 98, 49–81. doi: 10.1016/j.pneurobio.2012.05.004
Goldman-Rakic, PS, och Leung, HC (2002). ”Funktionell arkitektur av den dorsolaterala prefrontala cortex hos apor och människor”, i Principles of Frontal Lobe Function , red. DT Stuss och RT Knight (New York, NY: Oxford University Press), 85–95.
Goldstein, RZ, och Volkow, ND (2011). Dysfunktion i prefrontala cortex vid beroende: neuroavbildningsfynd och kliniska implikationer. Nat. Rev. Neurosci. 12, 652–669. doi: 10.1038/nrn3119
Goodman, A. (1993). Diagnos och behandling av sexuellt beroende. J. Sex Marital Ther. 19, 225–251. doi: 10.1080/00926239308404908
Goodman, A. (2001). Vad finns i ett namn? Terminologi för att beteckna ett syndrom av drivet sexuellt beteende. Sexual Addict. Compuls. 8, 191–213. doi: 10.1080/107201601753459919
Hamann, S., Herman, RA, Nolan, CL, och Wallen, K. (2004). Män och kvinnor reagerar olika i amygdala på visuella sexuella stimuli. Nat. Neurosci . 7, 411–416. doi: 10.1038/nn1208
Janssen, E., och Everaerd, W. (1993). Faktorer som påverkar manlig sexuell upphetsning. Ann. Rev. Sex Res. 4, 211–245. doi: 10.1080/10532528.1993.10559888
Kafka, MP (2010). Hypersexuell störning: en föreslagen diagnos för DSM-V. Arch. Sex. Behav. 39, 377–400. doi: 10.1007/s10508-009-9574-7
Kagerer, S., Wehrum, S., Klucken, T., Walter, B., Vaitl, D., och Stark, R. (2014). Sex attraherar: undersökning av individuella skillnader i uppmärksamhetsbias på sexuella stimuli. PLoS ONE 9:e107795. doi: 10.1371/journal.pone.0107795
Karama, S., Lecours, AR, Leroux, JM, Bourgouin, P., Beaudoin, G., Joubert, S., et al. (2002). Områden med hjärnaktivering hos män och kvinnor under tittande på erotiska filmutdrag. Hum. Brain Mapp , 16, 1–13. doi: 10.1002/hbm.10014
Kim, M., och Kwak, JB (2011). Cybersexberoende bland ungdomar i den digitala medieeran. J. Humanit. 29, 283–326.
Ko, CH, Liu, GC, Hsiao, S., Yen, JY, Yang, MJ, Lin, WC, et al. (2009). Hjärnaktiviteter associerade med spellust vid onlinespelberoende. J. Psychiatr. Res. 43, 739–747. doi: 10.1016/j.jpsychires.2008.09.012
Kor, A., Fogel, Y., Reid, RC, och Potenza, MN (2013). Bör hypersexuell störning klassificeras som ett beroende? Sex. Addict. Compuls. 20, 27–47. doi: 10.1080/10720162.2013.768132
Kühn, S., och Gallinat, J. (2014). Hjärnstruktur och funktionell konnektivitet i samband med pornografikonsumtion: hjärnan när det gäller porr. JAMA Psychiatry 71, 827–834. doi: 10.1001/jamapsychiatry.2014.93
Kuzma, JM, och Black, DW (2008). Epidemiologi, prevalens och naturlig förlopp för tvångsmässigt sexuellt beteende. Psychiatr. Clin. North Am. 31, 603–611. doi: 10.1016/j.psc.2008.06.005
Laier, C., och Brand, M. (2014). Empiriska bevis och teoretiska överväganden om faktorer som bidrar till cybersexberoende ur ett kognitivt beteendeperspektiv. Sex. Addict. Compuls. 21, 305–321. doi: 10.1080/10720162.2014.970722
Laier, C., Pawlikowski, M., Pekal, J., Schulte, FP, och Brand, M. (2013). Cybersexberoende: upplevd sexuell upphetsning vid pornografi och inte sexuella kontakter i verkliga livet gör skillnaden. J. Behav. Addict. 2, 100–107. doi: 10.1556/JBA.2.2013.002
Lang, PJ, Bradley, MM, och Cuthbert, BN (2008). International Affective Picture System (IAPS): Affektiva bedömningar av bilder och instruktionsmanual . Teknisk rapport A-8. Gainesville, FL: University of Florida.
MacLean, PD, och Ploog, DW (1962). Cerebral representation av penis erektion. J. Neurophysiol. 25, 29–55.
McClernon, FJ, Kozink, RV, Lutz, AM, och Rose, JE (2009). 24 timmars rökavhållsamhet förstärker fMRI-BOLD-aktivering av röksignaler i hjärnbarken och dorsala striatum. Psychopharmacology 204, 25–35. doi: 10.1007/s00213-008-1436-9
Moulier, V., Mouras, H., Pélégrini-Issac, M., Glutron, D., Rouxel, R., Grandjean, B., et al. (2006). Neuroanatomiska korrelat av penis erektion framkallad av fotografiska stimuli hos mänskliga män. Neurobild 33, 689–699. doi: 10.1016/j.neuroimage.2006.06.037
Patton, JH, Stanford, MS, och Barratt, ES (1995). Faktorstruktur för Barratt Impulsivitetsskalan. J. Clin. Psychol. 51, 768–774.
Paul, T., Schiffer, B., Zwarg, T., Krüger, TH, Karama, S., Schedlowski, M., et al. (2008). Hjärnans reaktion på visuella sexuella stimuli hos heterosexuella och homosexuella män. Hum. Brain Mapp. 29, 726–735. doi: 10.1002/hbm.20435
Pizzagalli, D., Pascual-Marqui, RD, Nitschke, JB, Oakes, TR, Larson, CL, Abercrombie, HC, et al. (2001). Aktivitet i främre cingulära muskler som en prediktor för graden av behandlingsrespons vid egentlig depression: bevis från analys av hjärnans elektriska tomografi. Am. J. Psychiatry 158, 405–415. doi: 10.1176/appi.ajp.158.3.405
Ponseti, J., Bosinski, HA, Wolff, S., Peller, M., Jansen, O., Mehdorn, HM, et al. (2006). En funktionell endofenotyp för sexuell läggning hos människor. Neuroimage 33, 825–833. doi: 10.1016/j.neuroimage.2006.08.002
Redouté, J., Stoléru, S., Grégoire, MC, Costes, N., Cinotti, L., Lavenne, F., et al. (2000). Hjärnbearbetning av visuella sexuella stimuli hos mänskliga män. Brum. Hjärnkarta. 11, 162-177. doi: 10.1002/1097-0193(200011)11:3<162::AID-HBM30>3.0.CO;2-A
Reid, RC, Garos, S., och Carpenter, BN (2011). Tillförlitlighet, validitet och psykometrisk utveckling av Hypersexual Behavior Inventory i ett öppenvårdsurval av män. Sex. Addict. Compuls. 18, 30–51. doi: 10.1080/10720162.2011.555709
Safron, A., Barch, B., Bailey, JM, Gitelman, DR, Parrish, TB, och Reber, PJ (2007). Neurala korrelat av sexuell upphetsning hos homosexuella och heterosexuella män. Behav. Neurosci. 121, 237–248. doi: 10.1037/0735-7044.121.2.237
Schafer, A., Schienle, A., och Vaitl, D. (2005). Stimulustyp och design påverkar hemodynamiska svar på visuell avsky och rädsloframkallare. Int. J. Psychophysiol. 57, 53–59. doi: 10.1016/j.ijpsycho.2005.01.011
Schneider, JP, och Schneider, B. (1991). Sex, lögner och förlåtelse: Par som talar ut om att läka från sexberoende. Center City, MN: Hazeldon Publishing.
Seegers, JA (2003). Förekomsten av symptom på sexuellt beroende på universitetsområdet. Sex. Addict. Compuls. 10, 247–258. doi: 10.1080/713775413
Stoléru, S., Fonteille, V., Cornélis, C., Joyal, C., och Moulier, V. (2012). Funktionella neuroavbildningsstudier av sexuell upphetsning och orgasm hos friska män och kvinnor: en översikt och metaanalys. Neurosci. Biobehav. Rev. 36, 1481–1509. doi: 10.1016/j.neubiorev.2012.03.006
Tapert, SF, Cheung, EH, Brown, GG, Frank, LR, Paulus, MP, Schweinsburg, AD, et al. (2003). Neural respons på alkoholstimuli hos ungdomar med alkoholberoende. Arch. Gen. Psychiatry 60, 727–735. doi: 10.1001/archpsyc.60.7.727
Vanderschuren, LJ, och Everitt, BJ (2005). Beteendemässiga och neurala mekanismer för tvångsmässigt drogsökande. Eur. J. Pharmacol. 526, 77–88. doi: 10.1016/j.ejphar.2005.09.037
Voon, V., Mole, TB, Banca, P., Porter, L., Morris, L., Mitchell, S., et al. (2014). Neurala korrelat av sexuell signalreaktivitet hos individer med och utan tvångsmässigt sexuellt beteende. PLoS ONE 9:e102419. doi: 10.1371/journal.pone.0102419
Weiss, D. (2004). Förekomsten av depression hos manliga sexmissbrukare bosatta i USA. Sex. Addict. Compulsivity 11, 57–69. doi: 10.1080/10720160490458247
Zarahn, E., Aguirre, G., och D'Esposito, M. (1997). En försöksbaserad experimentell design för fMRI. Neuroimage 6, 122–138. doi: 10.1006/nimg.1997.0279
Nyckelord: problematiskt hypersexuellt beteende, sexuell lust, funktionell magnetisk resonansavbildning, dorsolateral prefrontal cortex, hemodynamiskt svar
Citat: Seok JW och Sohn JH (2015) Neurala substrat för sexuell lust hos individer med problematiskt hypersexuellt beteende. Front. Behav. Neurosci . 9:321. doi: 10.3389/fnbeh.2015.00321
Mottagen: 18 juni 2015; Accepterat: 10 november 2015;
Publicerad: 30 november 2015.
Redigerad av:
Morten L. Kringelbach , University of Oxford, Storbritannien och University of Aarhus, Danmark, Storbritannien
Recenserad av:
Matthias Brand, Universitetet Duisburg-Essen, Tyskland
Janniko Georgiadis, Universitetsmedicinska Center Groningen, Nederländerna
Copyright © 2015 Seok och Sohn. Detta är en artikel med öppen åtkomst som distribueras enligt villkoren i Creative Commons Attribution License (CC BY) . Användning, distribution eller reproduktion i andra forum är tillåten, förutsatt att den/de ursprungliga författaren/författarna eller licensgivaren anges och att den ursprungliga publikationen i denna tidskrift citeras, i enlighet med god akademisk praxis. Ingen användning, distribution eller reproduktion är tillåten som inte överensstämmer med dessa villkor.
*Korrespondens: Jin-Hun Sohn, [email protected]