KOMMENTARER: När senare studier kommer att avslöja är DeltaFosB den vanliga molekylära omkopplaren för både läkemedels- och beteendemissbruk. Det är en transkriptionsfaktor som betyder att den påverkar vilka gener som slås på eller av. Som nämnts någon annanstans, kapar beroendeframkallande droger bara normala mekanismer. Det är därför det är dumt att föreslå att beteendemissbruk inte kan existera.
Proc Natl Acad Sci USA A. 2001 September 25; 98 (20): 11042-11046.
doi: 10.1073 / pnas.191352698.
Eric J. Nestler *, Michel Barrot och David W. Self
Institutionen för psykiatri och Centrum för grundläggande neurovetenskap, University of Texas Southwestern Medical Center, 5323 Harry Hines Boulevard, Dallas, TX 75390-9070
Abstrakt
Långvarigheten hos några av de beteendeavvikelser som kännetecknar drogberoende har antytt att reglering av neuralt genuttryck kan vara involverat i processen genom vilken droger orsakar ett tillstånd av beroende. Allt fler bevis tyder på att transkriptionsfaktorn ΔFosB representerar en mekanism genom vilken droger producerar relativt stabila förändringar i hjärnan som bidrar till beroendefenotypen. ΔFosB , en medlem av Fos - familjen av transkriptionsfaktorer, ackumuleras i en delmängd av neuroner i nucleus accumbens och dorsal striatum (hjärnregioner som är viktiga för beroende) efter upprepad administrering av många typer av droger. Liknande ackumulering av ΔFosB sker efter tvångsmässig löpning, vilket tyder på att ΔFosB kan ackumuleras som svar på många typer av tvångsbeteenden. Viktigt är att ΔFosB kvarstår i neuroner under relativt långa perioder på grund av dess extraordinära stabilitet. Därför representerar ΔFosB en molekylär mekanism som kan initiera och sedan upprätthålla förändringar i genuttryck som kvarstår långt efter att drogexponeringen upphör . Studier på inducerbara transgena möss som överuttrycker antingen ΔFosB eller en dominant negativ hämmare av proteinet ger direkta bevis för att ΔFosB orsakar ökad känslighet för de beteendemässiga effekterna av missbruksdroger och, möjligen, ökat drogsökande beteende. Detta arbete stöder uppfattningen att ΔFosB fungerar som en typ av ihållande "molekylär omkopplare" som gradvis omvandlar akuta läkemedelssvar till relativt stabila anpassningar som bidrar till den långsiktiga neurala och beteendemässiga plasticitet som ligger till grund för beroende.
Avviksforskning är inriktad på att förstå de komplexa sätten på vilka missbruksmedel förändrar hjärnan för att orsaka beteendeavvikelser som kännetecknar missbruk. En av de kritiska utmaningarna på fältet är att identifiera relativt stabila läkemedelsinducerade förändringar i hjärnan för att redogöra för de beteendeavvikelser som är särskilt långlivade. Till exempel kan en mänsklig missbrukare ha ökad risk för återfall, även efter år av abstinens.
Stabiliteten hos dessa beteendeavvikelser har lett till antagandet att de kan medieras, åtminstone delvis, genom förändringar i genuttryck (1–3). Enligt denna uppfattning stör upprepad exponering för en missbruksdrog upprepade gånger transmissionen vid specifika synapser i hjärnan som är känsliga för drogen. Sådana störningar signalerar så småningom via intracellulära budbärarkaskader till kärnan, där de först initierar och sedan upprätthåller förändringar i uttrycket av specifika gener. En primär mekanism genom vilken signaltransduktionsvägar påverkar genuttryck är regleringen av transkriptionsfaktorer, proteiner som binder till reglerande regioner i gener och modifierar deras transkription.
Ett mål för missbruksforskning har därför varit att identifiera transkriptionsfaktorer som förändras i hjärnregioner som är inblandade i missbruk efter kronisk administrering av missbruksmedel. Flera sådana transkriptionsfaktorer har identifierats under det senaste decenniet (1-6). Inriktningen för denna översyn ligger på en viss transkriptionsfaktor kallad ΔFosB.
Induktion av ΔFosB av missbrukande läkemedel
ΔFosB, kodad av fosB-genen, är medlem i Fos-familjen av transkriptionsfaktorer, som även innefattar c-Fos, FosB, Fra1 och Fra2 (7). Dessa Fos-familjeproteiner heterodimeriseras med Jun-familjeproteiner (c-Jun, JunB eller JunD) för att bilda aktiva AP-1 (aktivator protein-1) transkriptionsfaktorer som binder till AP-1-ställen (konsensussekvens: TGAC / GTCA) närvarande i promotorer av vissa gener för att reglera deras transkription.
Dessa Fos-familjeproteiner induceras snabbt och övergående i specifika hjärnområden efter akut administrering av många missbruksmedel (Fig. 1) (8-11). Framträdande regioner är kärnan accumbens och dorsal striatum, som är viktiga mediatorer av beteendemässiga svar på drogerna, i synnerhet deras givande och lokomotoriska aktiverande effekter (12, 13). Dessa proteiner återgår till basala nivåer inom några timmar efter administrering av läkemedel.
Figur 1
Schema som visar den gradvisa ackumuleringen av ΔFosB kontra den snabba och övergående induktionen av andra Fos-familjeproteiner som svar på missbruksdroger. (A) Autoradiogrammet illustrerar den differentiella induktionen av dessa olika proteiner genom akut stimulering (1–2 timmar efter en enda läkemedelsexponering) kontra kronisk stimulering (1 dag efter upprepad läkemedelsexponering). (B) Flera vågor av Fos-liknande proteiner [bestående av c-Fos (52- till 58-kDa isoformer), FosB (46- till 50-kDa isoformer), ΔFosB (33-kDa isoform) och Fra1 eller Fra2 (40 kDa)] induceras i nucleus accumbens och dorsala striatala neuroner genom akut administrering av ett missbruksdrog. Biokemiskt modifierade isoformer av ΔFosB (35–37 kDa) induceras också; även dessa induceras (dock i låga nivåer) efter akut läkemedelsadministrering, men kvarstår i hjärnan under långa perioder på grund av deras stabilitet. (C) Vid upprepad (t.ex. två gånger dagligen) läkemedelsadministrering inducerar varje akut stimulus en låg nivå av de stabila ΔFosB-isoformerna, vilket indikeras av den nedre uppsättningen överlappande linjer som indikerar ΔFosB inducerat av varje akut stimulus. Resultatet är en gradvis ökning av de totala nivåerna av ΔFosB med upprepade stimuli under en kronisk behandlingskur, vilket indikeras av den ökande stegvisa linjen i grafen.
Mycket olika reaktioner ses efter kronisk administrering av missbruksdroger (Fig. 1) . Biokemiskt modifierade isoformer av ΔFosB (molekylmassa 35–37 kDa) ackumuleras inom samma hjärnregioner efter upprepad läkemedelsexponering, medan alla andra Fos-familjemedlemmar uppvisar tolerans (det vill säga minskad induktion jämfört med initial läkemedelsexponering). Sådan ackumulering av ΔFosB har observerats för kokain, morfin, amfetamin, alkohol, nikotin och fencyklidin e (11, 14–18). Det finns vissa bevis för att denna induktion är selektiv för den dynorfin/substans P-innehållande delmängden av medelstora taggiga neuroner belägna i dessa hjärnregioner (15, 17), även om mer arbete behövs för att fastställa detta med säkerhet. 35- till 37-kDa-isoformerna av ΔFosB dimeriserar huvudsakligen med JunD för att bilda ett aktivt och långvarigt AP-1-komplex inom dessa hjärnregioner (19, 20). Dessa ΔFosB-isoformer ackumuleras vid kronisk läkemedelsexponering på grund av deras extremt långa halveringstider (21), och kvarstår därför i neuronerna i minst flera veckor efter att läkemedelsadministreringen avslutats. Det är intressant att notera att dessa ΔFosB-isoformer är mycket stabila produkter av en omedelbart tidig gen (fosB). Stabiliteten hos ΔFosB-isoformerna ger en ny molekylär mekanism genom vilken läkemedelsinducerade förändringar i genuttryck kan kvarstå trots relativt långa perioder av läkemedelsutsättning.
Trots att kärnan accumbens spelar en kritisk roll i missbrukande läkemedels givande effekter, anses det fungera normalt genom att reglera responsen på naturliga förstärkare, såsom mat, dryck, sex och sociala interaktioner (12, 13). Som ett resultat är det ett stort intresse för en möjlig roll i denna hjärnregion i andra tvångsmässiga beteenden (t.ex. patologisk överätning, spel, motion, etc.). Av denna anledning undersökte vi om ΔFosB är reglerad i en djurmodell av tvångsspår. Faktum är att de stabila 35- till 37-kDa-isoformerna av FFBB induceras selektivt i nukleär accumbens hos råttor som visar tvångsspårningsbeteende.
Biokemisk identitet av stabila FFB-isoformer
Såsom nämnts ovan visar de AFosB-isoformer som ackumuleras efter kronisk administrering av ett läkemedel av missbruk eller tvångsspårning en molekylmassa av 35-37 kDa. De kan differentieras från 33-kDa-isoformen av ΔFosB som induceras snabbt men övergående efter en enda läkemedelsexponering (Fig. 1) (14, 19, 22). Nuvarande bevis tyder på att 33-kDa-isoformen är den ursprungliga formen av proteinet, vilket förändras för att bilda de mer stabila 35- till 37-kDa-produkterna (19, 21). Naturen hos den biokemiska modifieringen som omvandlar den instabila 33-kDa-isoformen till de stabila 35- till 37-kDa-isoformerna har emellertid förblev obskyr. Det har spekulerats att fosforylering kan vara ansvarig (11). Exempelvis dämpas induktion av ΔFosB hos möss som saknar DARPP-32, ett striatalberikat protein (23, 24). Eftersom DARPP-32 reglerar den katalytiska aktiviteten av proteinfosfatas-1 och proteinkinas A (25, 26), föreslår kravet på detta protein för normal ackumulering av de stabila FFB-isoformerna en möjlig roll för fosforylering vid framställning av dessa stabila produkter.
Roll av ΔFosB i beteendeplasticitet mot missbrukande läkemedel
Insikt i ΔFosB:s roll i drogberoende har till stor del kommit från studier av transgena möss där ΔFosB kan induceras selektivt i nucleus accumbens och andra striatala regioner hos vuxna djur (27, 28). Viktigt är att dessa möss överuttrycker ΔFosB selektivt i de dynorfin/substans P-innehållande medium taggiga neuronerna, där läkemedlen tros inducera proteinet. Den beteendemässiga fenotypen hos de ΔFosB-överuttryckande mössen, som på många sätt liknar djur efter kronisk drogexponering, sammanfattas i tabell 1. Mössen visar förstärkta lokomotoriska svar på kokain efter akut och kronisk administrering (28). De visar också ökad känslighet för de belönande effekterna av kokain och morfin i platsbetingningsanalyser (11, 28) och kommer självadministrera lägre doser kokain än kullsyskon som inte överuttrycker ΔFosB.‡ Däremot visar dessa djur normal betingad lokomotorisk sensibilisering för kokain och normalt spatialt lärande i Morris vattenlabyrint (28). Dessa data indikerar att ΔFosB ökar ett djurs känslighet för kokain och eventuellt andra missbruksdroger och kan representera en mekanism för relativt långvarig sensibilisering mot drogerna.
 striatum
| Ökad rörelseaktivitet som svar på akut och upprepad kokainadministration. |
| Ökad givande respons på kokain och morfin i plats-konditioneringsanalyser. |
| Ökad självadministration av låga doser kokain. |
| Ökad motivation för prognoser för kokain i progressiva förhållanden. |
| Ökad anxiolytisk respons på alkohol. |
| Ökat kompulsivt körbeteende. |
Baserat på data i ref. 28 och 29. † ‡§¶
Behavioral plasticitet medierad av ΔFosB i kärnan accumbens-dorsal striatum
Dessutom finns det preliminära bevis för att effekterna av ΔFosB kan sträcka sig långt bortom en reglering av läkemedelskänslighet i sig till mer komplexa beteenden relaterade till beroendeprocessen. Möss som uttrycker ΔFosB arbetar hårdare för att självadministrera kokain i progressiva självadministreringstester, vilket tyder på att ΔFosB kan sensibilisera djur för kokainets motiverande egenskaper och därigenom leda till en benägenhet för återfall efter drogabstinens. ‡ ΔFosB-uttryckande möss visar också förbättrade ångestdämpande effekter av alkohol,§ en fenotyp som har associerats med ökat alkoholintag hos människor. Tillsammans tyder dessa tidiga fynd på att ΔFosB, förutom att öka känsligheten för missbruksdroger, producerar kvalitativa beteendeförändringar som främjar drogsökande beteende. Således kan ΔFosB fungera som en ihållande "molekylär omkopplare" som hjälper till att initiera och sedan upprätthålla viktiga aspekter av det beroende tillståndet. En viktig fråga under aktuell undersökning är om ΔFosB-ackumulering under drogexponering främjar drogsökande beteende efter längre abstinensperioder, även efter att ΔFosB-nivåerna har normaliserats (se nedan).
Vuxna möss som överuttrycker ΔFosB selektivt i nucleus accumbens och dorsal striatum uppvisar också större tvångsmässig löpning jämfört med kontrollkullsyskon.† Dessa observationer väcker den intressanta möjligheten att ΔFosB-ackumulering i dessa neuroner spelar en mer generell roll i bildandet och upprätthållandet av vaneminnen och tvångsbeteenden, kanske genom att förstärka effekten av neurala kretsar där dessa neuroner fungerar.
ΔFosB ackumuleras i vissa hjärnregioner utanför nucleus accumbens och dorsal striatum efter kronisk exponering för kokain. Framträdande bland dessa regioner är amygdala och mediala prefrontala cortex (15). Ett huvudmål med aktuell forskning är att förstå bidragen från ΔFosB-induktion i dessa regioner till beroendefenotypen.
Tidigare arbete med fosB knockout-möss avslöjade att dessa djur inte utvecklar sensibilisering för kokainens rörelseeffekter, vilket överensstämmer med resultaten från de ΔFosB-överuttryckande mössen som nämns ovan (22). FosB-mutanterna visade dock ökad känslighet för kokainens akuta effekter, vilket är oförenligt med dessa andra resultat. Tolkning av fynd med fosB-mutanterna är dock komplicerat av det faktum att dessa djur inte bara saknar ΔFosB utan även FosB i full längd. Dessutom saknar mutanterna både proteiner i hela hjärnan och från de tidigaste utvecklingsstadierna. Nyare arbete stöder faktiskt slutsatser från ΔFosB-överuttryckande möss: inducerbar överuttryckning av en trunkerad mutant av c-Jun, som fungerar som en dominerande negativ antagonist av ΔFosB, selektivt i nucleus accumbens och dorsal striatum visar minskad känslighet för de givande effekterna av kokain .¶ Dessa resultat betonar den försiktighet som måste användas vid tolkning av resultat från möss med konstitutiva mutationer och illustrerar vikten av möss med inducerbara och celltypspecifika mutationer i studier av plasticitet i vuxenhjärnan.
Målgener för ΔFosB
Eftersom ΔFosB är en transkriptionsfaktor orsakar proteinet förmodligen beteendemässig plasticitet genom förändringar i uttrycket av andra gener. ΔFosB genereras genom alternativ splitsning av fosB-genen och saknar en del av den C-terminala transaktiveringsdomänen som finns i fullängds-FosB. Som ett resultat föreslogs det ursprungligen att ΔFosB fungerar som en transkriptionsrepressor (29). Arbete inom cellkultur har dock tydligt visat att ΔFosB antingen kan inducera eller undertrycka AP-1-medierad transkription beroende på vilket specifikt AP-1-ställe som används (21, 29–31). Fulllängds-FosB utövar samma effekter som ΔFosB på vissa promotorfragment, men olika effekter på andra. Ytterligare arbete behövs för att förstå mekanismerna bakom dessa varierande effekter av ΔFosB och FosB.
Vår grupp har använt två metoder för att identifiera målgener för ΔFosB. En är kandidatgenmetoden. Vi betraktade initialt α-amino-3-hydroxi-5-metyl-4-isoxazolpropionsyra (AMPA) glutamatreceptorer som förmodade mål, med tanke på den viktiga rollen av glutamatergisk transmission i kärnan accumbens. Arbetet hittills har visat att en särskild AMPA-glutamatreceptorsubenhet, GluR2, kan vara ett bona fide-mål för ΔFosB (fig. 2). GluR2-uttryck, men inte uttryck för andra AMPA-receptorsubenheter, ökas i nucleus accumbens (men inte dorsalt striatum) vid överuttryck av ΔFosB (28), och expression av en dominerande negativ mutant försvagar kokainens förmåga att inducera proteinet .¶ Dessutom innehåller promotorn för GluR2-genen en konsensus AP-1-plats som binder AFosB (28). Överuttryck av GluR2 i nucleus accumbens, genom användning av viralmedierad genöverföring, ökar ett djurs känslighet för de givande effekterna av kokain och därmed efterliknar en del av fenotypen som ses i de ΔFosB-uttryckande mössen (28). Induktion av GluR2 skulle kunna redogöra för den minskade elektrofysiologiska känsligheten hos nucleus accumbens neurons för AMPA-receptoragonister efter kronisk kokainadministrering (32), eftersom AMPA-receptorer innehållande GluR2 visar minskad total konduktans och minskad Ca2 + -permeabilitet. Minskad lyhördhet hos dessa neuroner mot excitatoriska ingångar kan sedan förbättra svaret på ett missbrukande läkemedel. De sätt på vilka dopaminerga och glutamatergiska signaler i nucleus accumbens reglerar beroendeframkallande beteende är emellertid okända; detta kommer att kräva en neurologisk kretsnivå av förståelse, som ännu inte är tillgänglig.
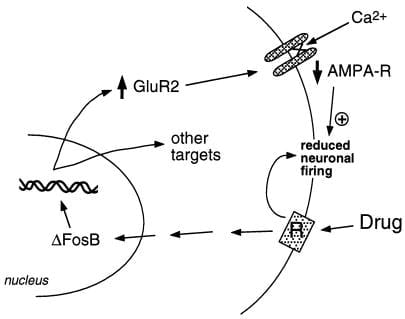
Figur 2
AMPA-glutamatreceptorsubenheten, GluR2, är ett förmodat mål för ΔFosB. Här visas hur ΔFosB-medierad induktion av GluR2 kan förändra den fysiologiska responsen hos nucleus accumbens-neuroner och leda till sensibiliserade reaktioner på missbruksdroger. Enligt detta schema producerar missbruksdroger sina akuta förstärkande effekter via hämning av nucleus accumbens-neuroner. Vid upprepad exponering inducerar läkemedlen ΔFosB, vilket reglerar ett flertal målgener, inklusive GluR2. Detta ökar andelen AMPA-receptorer (AMPA-R) på nucleus accumbens-neuroner som innehåller GluR2-subenheten, vilket orsakar minskad total AMPA-ström och minskad Ca2+-ström. Denna minskade excitabilitet kan göra neuronerna mer känsliga för läkemedlens akuta hämmande effekter och därmed för läkemedlens förstärkande effekter.
Ett annat förmodat mål för ΔFosB är genen som kodar för dynorfin . Som tidigare nämnts uttrycks dynorfin i den delmängd av nucleus accumbens medium taggiga neuroner som uppvisar induktion av ΔFosB . Dynorfin verkar fungera i en intercellulär återkopplingsslinga: dess frisättning hämmar de dopaminerga neuroner som innerverar de medium taggiga neuronerna, via κ-opioidreceptorer som finns på dopaminerga nervterminaler i nucleus accumbens och även på cellkroppar och dendriter i det ventrala tegmentala området (Fig. 3) (33–35). Denna idé överensstämmer med förmågan hos en κ-receptoragonist, vid administrering i någon av dessa två hjärnregioner, att minska läkemedelsbelöning (35).
Nyligen genomförda studier har visat att ΔFosB minskar uttrycket av dynorfin, vilket skulle kunna bidra till förstärkningen av belöningsmekanismer som ses vid ΔFosB-induktion. Intressant nog utövar en annan läkemedelsreglerad transkriptionsfaktor, CREB (cAMP response element binding protein) (2, 3), motsatt effekt: den inducerar dynorfinuttryck i nucleus accumbens och minskar de belönande egenskaperna hos kokain och morfin (4).
Eftersom läkemedelsinducerad aktivering av CREB avtar snabbt efter läkemedelsadministrering, kan sådan ömsesidig reglering av dynorfin av CREB och ΔFosB förklara de ömsesidiga beteendeförändringarna som sker under tidiga och sena faser av abstinens, med negativa känslomässiga symtom och minskad läkemedelskänslighet som dominerar under tidiga faser av abstinens, och sensibilisering för de belönande och incitamentsgivande motivationseffekterna av läkemedel som dominerar vid senare tidpunkter.
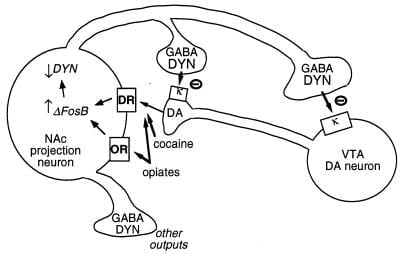
Figur 3
Dynorfin är ett förmodat mål för ΔFosB. Visas en dopamin (DA)-neuron i det ventrala tegmentala området (VTA) som innerverar en klass av nucleus accumbens (NAc) GABAerg projektionsneuron som uttrycker dynorfin (DYN). Dynorfin fungerar som en återkopplingsmekanism i denna krets: dynorfin, som frisätts från terminalerna av NAc-neuronerna, verkar på κ-opioidreceptorer belägna på nervterminaler och cellkroppar hos DA-neuronerna för att hämma deras funktion. ΔFosB kan , genom att hämma dynorfinuttryck, nedreglera denna återkopplingsslinga och förbättra de belönande egenskaperna hos missbruksdroger. Den ömsesidiga effekten av CREB på detta system visas inte: CREB förstärker dynorfinuttryck och försvagar därmed de belönande egenskaperna hos missbruksdroger (4). GABA, γ-aminosmörsyra; DR, dopaminreceptor; OR, opioidreceptor.
Det andra tillvägagångssättet som används för att identifiera målgener för ΔFosB involverar DNA-mikroarrayanalys. Inducerbart överuttryck av ΔFosB ökar eller minskar expressionen av många gener i nucleus accumbens (36). Även om betydande arbete nu behövs för att validera var och en av dessa gener som fysiologiska mål för ΔFosB och för att förstå deras bidrag till missbruksfenotypen, verkar ett viktigt mål vara Cdk5 (cyklinberoende kinas-5). Således identifierades Cdk5 ursprungligen som ΔFosB-reglerad med användning av mikroarrayer, och visades senare induceras i nucleus accumbens och dorsal striatum efter kronisk kokainadministration (37). ΔFosB aktiverar cdk5-genen via en AP-1-plats närvarande i genens promotor (36). Tillsammans stöder dessa data ett schema där kokain inducerar Cdk5-uttryck i dessa hjärnregioner via ΔFosB. Induktion av Cdk5 verkar förändra dopaminerg signalering åtminstone delvis via ökad fosforylering av DARPP-32 (37), som omvandlas från en hämmare av proteinfosfatas-1 till en hämmare av proteinkinas A efter dess fosforylering av Cdk5 (26).
Roll av ΔFosB i att mediera "permanent" plasticitet mot missbruk
Även om ΔFosB-signalen är relativt långlivad är den inte permanent. ΔFosB bryts ned gradvis och kan inte längre detekteras i hjärnan efter 1–2 månaders drogutsättning, även om vissa beteendeavvikelser kvarstår under mycket längre tidsperioder. Därför verkar ΔFosB i sig inte kunna mediera dessa semipermanenta beteendeavvikelser. Svårigheten att hitta de molekylära anpassningar som ligger till grund för de extremt stabila beteendeförändringarna som är förknippade med missbruk är analog med de utmaningar som finns inom inlärnings- och minnesområdet. Även om det finns eleganta cellulära och molekylära modeller av inlärning och minne har det hittills inte varit möjligt att identifiera molekylära och cellulära anpassningar som är tillräckligt långlivade för att förklara mycket stabila beteendeminnen. ΔFosB är faktiskt den längstlivade anpassningen som är känd för att inträffa i en vuxen hjärna, inte bara som svar på missbruksdroger, utan även på andra störningar (som inte involverar lesioner). Två förslag har utvecklats, både inom missbruks- och inlärnings- och minnesområdet, för att förklara denna skillnad.
En möjlighet är att mer övergående förändringar i genuttryck, såsom de som medieras via ΔFosB eller andra transkriptionsfaktorer (t.ex. CREB), kan mediera mer långlivade förändringar i neuronal morfologi och synaptisk struktur. Till exempel åtföljer en ökning av densiteten av dendritiska taggar (särskilt en ökning av tvåhövdade taggar) den ökade effekten av glutamaterga synapser vid hippocampus pyramidala neuroner under långvarig potentiering (38–40), och parallellt med den ökade beteendekänsligheten för kokain medierad på nivån av medelstora taggiga neuroner i nucleus accumbens (41). Det är inte känt om sådana strukturella förändringar är tillräckligt långlivade för att förklara mycket stabila beteendeförändringar, även om de senare kvarstår i minst 1 månad efter drogutsättning. Nyligen publicerade bevis tyder på att ΔFosB, och dess induktion av Cdk5, är en mediator av läkemedelsinducerade förändringar i den synaptiska strukturen i nucleus accumbens (Fig. 4).‡‡ Infusion av en Cdk5-hämmare i nucleus accumbens förhindrar således upprepad kokainexponering förmågan att öka dendritisk ryggradstäthet i denna region. Detta överensstämmer med uppfattningen att Cdk5, som är anrikat i hjärnan, reglerar neural struktur och tillväxt (se ref. 36 och 37). Det är möjligt, men inte på något sätt bevisat, att sådana förändringar i neuronal morfologi kan överleva själva ΔFosB-signalen.
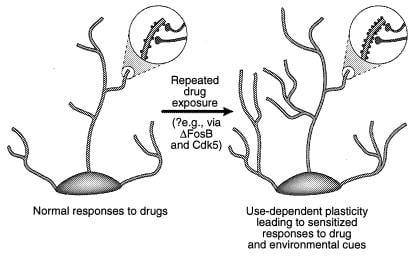
Figur 4
Reglering av dendritisk struktur med missbrukande droger. Visad är expansionen av en neurons dendritiska träd efter kronisk exponering för ett missbrukande läkemedel, vilket har observerats med kokain i nucleus accumbens och prefrontal cortex (41). Förstoringsområdena visar en ökning av dendritiska ryggar, vilket antas förekomma i samband med aktiverade nervterminaler. Denna ökning av dendritisk ryggradstäthet kan medieras via ΔFosB och den därav följande induktionen av Cdk5 (se text). Sådana förändringar i dendritisk struktur, som liknar de som observerats i vissa inlärningsmodeller (t.ex. långvarig potentiering), kan förmedla långlivade sensibiliserade reaktioner på missbrukande droger eller miljömässiga signaler. [Reproducerad med tillstånd från ref. 3 (Copyright 2001, Macmillian Magazines Ltd.)].
En annan möjlighet är att den övergående induktionen av en transkriptionsfaktor (t.ex. ΔFosB, CREB) leder till mer permanenta förändringar i genuttryck genom modifiering av kromati . Dessa och många andra transkriptionsfaktorer tros aktivera eller undertrycka transkriptionen av en målgen genom att främja acetylering respektive deacetylering av histoner i närheten av genen (42). Även om sådan acetylering och deacetylering av histoner tydligen kan ske mycket snabbt, är det möjligt att ΔFosB eller CREB kan producera mer långvariga anpassningar i den enzymatiska maskineri som styr histonacetylering. ΔFosB eller CREB kan också främja mer långvariga förändringar i genuttryck genom att reglera andra modifieringar av kromatin (t.ex. DNA- eller histonmetylering) som har implicerats i de permanenta förändringar i gentranskription som sker under utvecklingen (se ref. 42 och 43). Även om dessa möjligheter förblir spekulativa, skulle de kunna tillhandahålla en mekanism genom vilken övergående anpassningar till en missbruksdrog (eller någon annan störning) leder till i huvudsak livslånga beteendemässiga konsekvenser.
Referensprojekt
- ↵
- Nestler EJ,
- Hoppas BT,
- Widnell KL
(1993) Neuron 11: 995-1006.
CrossRef Medline Web of Science
- ↵
- Berke JD,
- Hyman SE
(2000) Neuron 25: 515-532.
CrossRef Medline Web of Science
- ↵
- Nestler EJ
(2001) Nat Rev Neurosci 2: 119-128.
CrossRef Medline Web of Science
- ↵
- Carlezon WA Jr,
- Thome J,
- Olson VG,
- Lane-Ladd SB,
- Brodkin ES,
- Hiroi N,
- Duman RS,
- Neve RL,
- Nestler EJ
(1998) Vetenskap 282: 2272-2275.
Sammanfattning / GRATIS Fullständig text
-
- O'Donovan KJ,
- Tourtellotte WG,
- Millbrandt J,
- Baraban JM
(1999) Trender Neurosci 22: 167-173.
CrossRef Medline Web of Science
- ↵
- Mackler SA,
- Korutla L,
- Cha XY,
- Koebbe MJ,
- Fournier KM,
- Bowers MS,
- Kalivas PW
(2000) J Neurosci 20: 6210-6217.
Sammanfattning / GRATIS Fullständig text
- ↵
- Morgan JI,
- Curran T
(1995) Trender Neurosci 18: 66-67.
CrossRef Medline Web of Science
- ↵
- Young ST,
- Porrino LJ,
- Iadarola MJ
(1991) Proc Natl Acad Sci USA 88: 1291-1295.
Sammanfattning / GRATIS Fullständig text
-
- Graybiel AM,
- Moratalla R,
- Robertson HA
(1990) Proc Natl Acad Sci USA 87: 6912-6916.
Sammanfattning / GRATIS Fullständig text
-
- Hopp B,
- Kosofsky B,
- Hyman SE,
- Nestler EJ
(1992) Proc Natl Acad Sci USA 89: 5764-5768.
Sammanfattning / GRATIS Fullständig text
- ↵
- Kelz MB,
- Nestler EJ
(2000) Curr Opin Neurol 13: 715-720.
CrossRef Medline Web of Science
- ↵
- Koob GF,
- Sanna PP,
- Bloom FE
(1998) Neuron 21: 467-476.
CrossRef Medline Web of Science
- ↵
- Wise RA
(1998) Drogalkoholberoende 51: 13-22.
CrossRef Medline Web of Science
- ↵
- Hoppas BT,
- Nye HE,
- Kelz MB,
- Själv DW,
- Iadarola MJ,
- Nakabeppu Y,
- Duman RS,
- Nestler EJ
(1994) Neuron 13: 1235-1244.
CrossRef Medline Web of Science
- ↵
- Nye H,
- Hoppas BT,
- Kelz M,
- Iadarola M,
- Nestler EJ
(1995) J Pharmacol Exp Ther 275: 1671-1680.
Sammanfattning / GRATIS Fullständig text
-
- Nye HE,
- Nestler EJ
(1996) Mol Pharmacol 49: 636-645.
- ↵
- Moratalla R,
- Elibol B,
- Vallejo M,
- Graybiel AM
(1996) Neuron 17: 147-156.
CrossRef Medline Web of Science
- ↵
- Pich EM,
- Pagliusi SR,
- Tessari M,
- Talabot-Ayer D,
- Hooft van Huijsduijnen R,
- Chiamulera C
(1997) Vetenskap 275: 83-86.
Sammanfattning / GRATIS Fullständig text
- ↵
- Chen JS,
- Nye HE,
- Kelz MB,
- Hiroi N,
- Nakabeppu Y,
- Hoppas BT,
- Nestler EJ
(1995) Mol Pharmacol 48: 880-889.
- ↵
- Hiroi N,
- Brown J,
- Ye H,
- Saudou F,
- Vaidya VA,
- Duman RS,
- Greenberg ME,
- Nestler EJ
(1998) J Neurosci 18: 6952-6962.
Sammanfattning / GRATIS Fullständig text
- ↵
- Chen J,
- Kelz MB,
- Hoppas BT,
- Nakabeppu Y,
- Nestler EJ
(1997) J Neurosci 17: 4933-4941.
Sammanfattning / GRATIS Fullständig text
- ↵
- Hiroi N,
- Brown J,
- Haile C,
- Ye H,
- Greenberg ME,
- Nestler EJ
(1997) Proc Natl Acad Sci USA 94: 10397-10402.
Sammanfattning / GRATIS Fullständig text
- ↵
- Fienberg AA,
- Hiroi N,
- Mermelstein P,
- Song WJ,
- Snyder GL,
- Nishi A,
- Cheramy A,
- O'Callaghan JP,
- Miller D,
- Cole GD,
- et al.
(1998) Vetenskap 281: 838-842.
Sammanfattning / GRATIS Fullständig text
- ↵
- Hiroi N,
- Feinberg A,
- Haile C,
- Greengard P,
- Nestler EJ
(1999) Eur J Neurosci 11: 1114-1118.
CrossRef Medline Web of Science
- ↵
- Greengard P,
- Allen PB,
- Nairn AC
(1999) Neuron 23: 435-447.
CrossRef Medline Web of Science
- ↵
- Bibb JA,
- Snyder GL,
- Nishi A,
- Yan Z,
- Meijer L,
- Fienberg AA,
- Tsai LH,
- Kwon YT,
- Girault JA,
- Czernik AJ,
- et al.
(1999) Nature (London) 402: 669-671.
- ↵
- Chen JS,
- Kelz MB,
- Zeng GQ,
- Sakai N,
- Steffen C,
- Shockett PE,
- Picciotto M,
- Duman RS,
- Nestler EJ
(1998) Mol Pharmacol 54: 495-503.
Sammanfattning / GRATIS Fullständig text
- ↵
- Kelz MB,
- Chen JS,
- Carlezon WA,
- Whisler K,
- Gilden L,
- Beckmann AM,
- Steffen C,
- Zhang YJ,
- Marotti L,
- Själv SW,
- et al.
(1999) Nature (London) 401: 272-276.
- ↵
- Dobrazanski P,
- Noguchi T,
- Kovary K,
- Rizzo CA,
- Lazo PS,
- Bravo R
(1991) Molcell Biol 11: 5470-5478.
Sammanfattning / GRATIS Fullständig text
-
- Nakabeppu Y,
- Nathans D
(1991) Cell 64: 751-759.
CrossRef Medline Web of Science
- ↵
- Yen J,
- Visdom RM,
- Tratner I,
- Verma IM
(1991) Proc Natl Acad Sci USA 88: 5077-5081.
Sammanfattning / GRATIS Fullständig text
- ↵
- Vit FJ,
- Hu XT,
- Zhang XF,
- Wolf ME
(1995) J Pharmacol Exp Ther 273: 445-454.
Sammanfattning / GRATIS Fullständig text
- ↵
- Hyman SE
(1996) Neuron 16: 901-904.
CrossRef Medline Web of Science
-
- Kreek MJ
(1997) Pharmacol Biochem Behav 57: 551-569.
CrossRef Medline Web of Science
- ↵
- Shippenberg TS,
- Rea W
(1997) Pharmacol Biochem Behav 57: 449-455.
CrossRef Medline Web of Science
- ↵
- Chen JS,
- Zhang YJ,
- Kelz MB,
- Steffen C,
- Ang ES,
- Zeng L,
- Nestler EJ
(2000) J Neurosci 20: 8965-8971.
Sammanfattning / GRATIS Fullständig text
- ↵
- Bibb JA,
- Chen JS,
- Taylor JR,
- Svenningsson P,
- Nishi A,
- Snyder GL,
- Yan Z,
- Sagawa ZK,
- Nairn AC,
- Nestler EJ,
- et al.
(2001) Nature (London) 410: 376-380.
- ↵
- Luscher C,
- Nicoll RA,
- Malenka RC,
- Muller D
(2000) Nat Neurosci 3: 545-550.
CrossRef Medline Web of Science
-
- Malinow R,
- Mainen ZF,
- Hayashi Y
(2000) Curr Opin Neurobiol 10: 352-357.
CrossRef Medline Web of Science
- ↵
- Scannevin RH,
- Huganir RL
(2000) Nat Rev Neurosci 1: 133-141.
CrossRef Medline Web of Science
Robinson, TE & Kolb, B. (1999) (1997) Eur. J. Neurosci. 11, 1598–1604.
- ↵
- Carey M,
- Smale ST
(2000) transkriptionsreglering i eukaryoter (Cold Spring Harbor Lab. Press, Plainview, NY).
- ↵
- Spencer VA,
- Davie JR
(1999) Gene 240: 1-12.
CrossRef Medline Web of Science
 Facebook
 Twitter
- Google+
 CiteULike
 Utsökt
 digg
 Mendeley
HighWire Press-värd artiklar som citerar denna artikel
- Natural and Drug Rewards Act om gemensamma neurala plastisitetsmekanismer med {Delta} FosB som nyckelmedlare J. Neurosci. 2013 33 (8) 3434-3442
- Droger, brottslighet och epigenetiken av Hedonic Allostasis Journal of Contemporary Criminal Justice 2012 28 (3) 314-328
- Abstrakt
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Abstrakt
- Fulltext (HTML)
- Fulltext (PDF)
- Morfin aktiverar E tjugosjiktliknande transkriptionsfaktor-1 / Serum Response Factor Pathway via extracellulära signalreglerade Kinaser 1 / 2 i F11-celler som härrör från Dorsal Root Ganglia Neurons J. Pharmacol. Exp. Ther. 2012 342 (1) 41-52
- Molekylär mekanism för en Gateway Drug: Epigenetiska förändringar initierade av Nicotin Prime Gene Expression av Cocaine Sci Transl Med 2011 3 (107) 107ra109
- Förhöjd sackaros- och kokain-självadministration och Cue-inducerad läkemedel Söker efter förlust av VGLUT2 i midbrain-dopaminneuroner i möss J. Neurosci. 2011 31 (35) 12593-12603
- Kronisk intermittent hypoxi ökar blodtrycket och uttrycket av FosB / {Delta} FosB i centrala autonoma regioner Am. J. Physiol. Regul. Integr. Comp. Physiol. 2011 301 (1) R131-R139
- Frånvaron av GPR37 / PAEL-receptorn försämrar striatal Akt och ERK2 fosforylering, {Delta} FosB uttryck och konditionerad platspreferens till amfetamin och kokain FASEB J. 2011 25 (6) 2071-2081
- Förhållandet mellan varaktigheten av inledande alkoholpåverkan och persistensen av molekylär tolerans är markant icke-linjär J. Neurosci. 2011 31 (7) 2436-2446
- In vivo Bioluminescence Imaging avslöjar Redox-Regulerad Activator Protein-1 Aktivering i Paraventrikulär Nukleus med Möss Med Renovaskulär Hypertension Hypertoni 2011 57 (2) 289-297
- Striatal överuttryck av {Delta} FosB reproducerar kronisk levodopa-inducerad ofrivillig rörelse J. Neurosci. 2010 30 (21) 7335-7343
- Epigenetisk medling av miljöpåverkan vid större psykotiska störningar Schizophr Bull 2009 35 (6) 1045-1056
- DNA-baserade MR-prober för specifik upptäckt av kronisk exponering för amfetamin i levande hjärnor J. Neurosci. 2009 29 (34) 10663-10670
- Förändrad dendritisk ryggradsplasticitet i kokain-utdragna råttor J. Neurosci. 2009 29 (9) 2876-2884
- Overexpression Skärm i Drosophila identifierar neuronala roller av GSK-3 {beta} / shaggy som en regulator av AP-1-beroende utvecklingsplasticitet Genetik 2008 180 (4) 2057-2071
- Transcription MRI: En ny syn på den levande hjärnan Neuroscientist 2008 14 (5) 503-520
- {Delta} FosB-induktion i orbitofrontala cortexmedier Tolerans mot kokain-inducerad kognitiv dysfunktion J. Neurosci. 2007 27 (39) 10497-10507
- Uppehållande sårbarhet för återinförande av metamfetamin-sökande beteende hos glialcellslinje-härledda neurotrofiska faktormutantmöss FASEB J. 2007 21 (9) 1994-2004
- {Delta} FosB i Nucleus Accumbens reglerar matförstärkt instrumentalt beteende och motivation J. Neurosci. 2006 26 (36) 9196-9204
- Reglering av {Delta} FosB-stabilitet genom fosforylering. J. Neurosci. 2006 26 (19) 5131-5142
- Uttryck av mutant NMDA-receptorer i dopamin-D1-receptor-innehållande celler förhindrar koksin-sensibilisering och minskar kokainpreferensen J. Neurosci. 2005 25 (28) 6651-6657
- D1-dopaminreceptorer Modulera {Delta} FosB-induktion i råtta Striatum efter intermittent morfinadministration J. Pharmacol. Exp. Ther. 2005 314 (1) 148-154
- Neurobiologi hos möss utvalda för högfrivillig rullande aktivitet Integr. Comp. Biol. 2005 45 (3) 438-455
- Effekter av vattenavskrivning och rehydrering på c-Fos och FosB-färgning i den supraoptiska kärnan och lamina terminalis-regionen Am. J. Physiol. Regul. Integr. Comp. Physiol. 2005 288 (1) R311-R321
- Transkriptionell induktion av FosB / {Delta} FosB gen genom mekanisk stress i osteoblaster J Biol Chem 2004 279 (48) 49795-49803
- Induktion av {Delta} FosB i belöningsrelaterade hjärnstrukturer efter kronisk stress J. Neurosci. 2004 24 (47) 10594-10602
- Sim1-gendos modulerar det homeostatiska utfodringssvaret på ökat dietfett hos möss Am. J. Physiol. Endocrinol. Metab. 2004 287 (1) E105-E113
- DNA-mikroarrayanalys av genuttryck i astrocyter i humant optiskt nervhuvud som svar på hydrostatiskt tryck Physiol. Genomics 2004 17 (2) 157-169
- Superoxid är involverad i central nervsystemet aktivering och sympatisk excitering av hjärtinfarkt-inducerad hjärtinfarkt Circ. Res. 2004 94 (3) 402-409
- Adenosin A2A-receptorer vid neuroadaptation till upprepad dopaminerg stimulering: Implikationer för behandling av dyskinesier vid Parkinsons sjukdom Neurologi 2003 61 (90116) S74-81
- Cytoplasmisk Versus Nukleär Lokalisering av Fosrelaterade Proteiner i Grodan, Rana Esculenta, Testis: In Vivo och Direkt In Vitro Effekt En Gonadotropin Releasing Hormone Agonist Biol. Reprod. 2003 68 (3) 954-960
- Periadolescenta möss visar förbättrad Delta FosB Upregulation som svar på kokain och amfetamin J. Neurosci. 2002 22 (21) 9155-9159
- Delta FosB reglerar hjulkörning J. Neurosci. 2002 22 (18) 8133-8138
- CREB-aktivitet i kärnan accumbens skal kontrollerar gating av beteendemässiga svar på emotionella stimuli Proc. Natl. Acad. Sci. USA 2002 99 (17) 11435-11440
- Psykogenomik: Möjligheter till övertygande missbruk J. Neurosci. 2001 21 (21) 8324-8327