Biolpsykiatri. 2008 Dec 1; 64 (11): 941-50. Epub 2008 Jul 26.
Teegarden SL, Nestler EJ, Bale TL.
Källa
Institutionen för djurbiologi, University of Pennsylvania, Philadelphia, PA 19104-6046, USA.
Abstrakt
BAKGRUND:
Känslighet för belöning har blivit implicerad som en predisponeringsfaktor för beteenden relaterade till drogmissbruk såväl som överspädning. De underliggande mekanismerna som bidrar till att belöna känsligheten är emellertid okända. Vi antydde att en dysregulering i dopamin-signalering kan vara en bakomliggande orsak till ökad känslighet för belöningen, varigenom belöningsstimuler kan fungera för att normalisera systemet.
METODER:
Vi använde en genetisk musmodell med ökad känslighet för känslighet, den Delta FosB-överuttryckta musen, för att undersöka belöningsbanans förändringar som svar på en godtagbar fetthaltig diet. Markörer av belöningssignalering i dessa möss undersöktes både basalt och efter 6-veckor av godtagbar dietsexponering. Möss undersöktes i ett beteendestest efter hög fetthaltig borttagning av dieten för att bedöma sårbarheten hos denna modell för att avlägsna givande stimuli.
RESULTAT:
Våra resultat visar förändrad aktivering av belöningsvägarna längs kretsarna i nucleus accumbens-hypothalamus-ventral tegmental area till följd av överuttryck av DeltaFosB i nucleus accumbens och striatala regioner . Nivåerna av fosforylerat cykliskt adenosinmonofosfat (cAMP) responselementbindande protein (pCREB), hjärnderiverad neurotrofisk faktor (BDNF) och dopamin- och cykliskt adenosinmonofosfatreglerat fosfoprotein med en molekylmassa på 32 kDa (DARPP-32) i nucleus accumbens minskade hos DeltaFosB-möss, vilket tyder på minskad dopaminsignalering. Sex veckors exponering för fettrik kost förbättrade dessa skillnader fullständigt och avslöjade den starka belöningsförmågan hos en välsmakande kost. DeltaFosB-möss visade också en signifikant ökning av rörelseaktivitet och ångestrelaterade svar 24 timmar efter fettrik kostuttag.
SLUTSATSER:
Dessa resultat etablerar en underliggande känslighet för förändringar i belöning relaterad till dysreglering av DeltaFosB och dopaminsignalering som kan normaliseras med välsmakande dieter och kan vara en predisponerande fenotyp i vissa former av fetma.
Beskrivning
Trots vår ökande kunskap om de neurala system som kontrollerar aptit och mättnadskänsla fortsätter fetma att öka i USA. Nuvarande läkemedelsbehandlingar har begränsad effekt, och beteendeförändringar lider av minimal långsiktig följsamhet (1). Konsumtion av kaloririka, välsmakande livsmedel har kopplats till förändringar i stress- och belöningsvägar i hjärnan, vilket tyder på att de belönande egenskaperna hos sådana livsmedel kan åsidosätta energibalanssignaler (2-4). Livsmedel med hög fetthalt fungerar som naturliga belöningar och aktiverar hjärnans belöningscentra på ett sätt som liknar drogmissbruk, och har därför använts i självadministreringsparadigmer (5-8). Det är således troligt att beteenden och motivation för överätning och drogmissbruk delar gemensamma underliggande mekanismer, vilket potentiellt öppnar upp nya behandlingsvägar för båda tillstånden.
I studier av sambandet mellan välsmakande livsmedel och de vägar som reglerar belöning och stress i hjärnan har vi tidigare identifierat molekylära och biokemiska markörer för minskad belöning och ökad stress efter utsättning från en välsmakande fettrik kost (HF). I likhet med missbruksdroger resulterade exponering för en välsmakande kost i våra studier i ökade nivåer av transkriptionsfaktorn ΔFosB i nucleus accumbens (NAc), en central belöningsstruktur i hjärnan (9, 10) . Möss som inducerbart överuttrycker ΔFosB visar ökad instrumentell respons på en matbelöning (11), vilket gör dem till ett värdefullt verktyg för att undersöka rollen av belöningskänslighet och långsiktig dysreglering av belöningssystemet i de molekylära och biokemiska svaren på en välsmakande kost.
I den föreliggande studien använde vi möss som överuttryckte ΔFosB för att undersöka långsiktiga förändringar i belöningsmarkörer i NAc-hypotalamus-ventral tegmental area (VTA) neurokretsarna som svar på en välsmakande HF-kost. Baserat på tidigare studier på dessa belöningskänsliga möss antog vi att ΔFosB-inducerade förändringar i belöningskänslighet involverar en dysreglering i dopaminsignalering till följd av NAc-feedback till VTA. Vidare antog vi att exponering för en naturlig belöning i form av en energität HF-kost sedan skulle normalisera det dopaminerga systemet hos dessa möss, vilket resulterar i en överdriven respons på stressen vid abstinens från denna HF-kost. Den unika aspekten av att använda en välsmakande kost som ett givande ämne gör att vi kan inkludera hypotalamiska input i belöningskretsarna i en fenotyp som kan vara prediktiv för en population som är predisponerad för behandlingsresistent fetma. För att undersöka denna hypotes studerade vi markörer för dopamin-neurotransmission, inklusive pCREB, BDNF och DARPP-32 i NAc och tyrosinhydroxylas och dopamintransportören i VTA, efter HF-exponering. Vi undersökte också specifika markörer för energibalans som är kända för att påverka dopaminproduktionen, inklusive leptin- och orexinreceptorer i VTA och orexinuttryck i den laterala hypotalamus.
Material och metoder
djur
Manliga bitransgena möss som inducerat överuttryckt ΔFosB i dynorfin-positiva neuroner i NAc och dorsalstriatum (Kelz et al., 1999) genererades på en blandad bakgrund (ICR: C57Bl6 / SJL) vid University of Texas Southwestern Medical Center och upprätthölls och testad vid University of Pennsylvania. Alla möss behölls på doxycyklin (100 μg / ml i dricksvattnet) tills de kom till University of Pennsylvania. För att inducera överuttryck avlägsnades doxycyklin (n = 23) (12). Kontrollmöss (n = 26) fortsatte att ta emot läkemedlet. Mössen tilldelades dietgrupper åtta veckor efter avlägsnandet av doxycylin vid vilken tidpunkt expression har visat sig nå maximala nivåer (13). Möss upprätthölls på en 12: 12 ljusmörk cykel (lampor på 0700) med mat och vatten tillgängligt ad libitum. Alla studier utfördes enligt experimentella protokoll godkända av University of Pennsylvania Institutionella djurvård och användningskommitté, och alla förfaranden genomfördes i enlighet med institutionella riktlinjer.
Diet exponering
Möss behölls på house chow (n = 16) eller placerades på HF (n = 16-17) under sex veckor. House Chow (Purina Lab Diet, St. Louis, MO) innehöll 4.00 kcal / g, bestående av 28% protein, 12% fett och 60% kolhydrat. HF-diet (forskningsdiett, New Brunswick, NJ) innehöll 4.73 kcal / g, bestående av 20% protein, 45% fett och 35% kolhydrat.
Biokemi och genuttryck
Möss analyserades efter sex veckors dietsexponering. Hjärnor avlägsnades från skalle och antingen fryst hel på torris eller NAc-dissekerad (ungefär 0.5 - 1.75 mm från bregma, vid ett djup av 3.5 - 5.5 mm) och fryst i flytande kväve. Vävnad lagrades vid -80 ° C tills det analyserades.
Biokemiska analyser
Metoder för Western blots beskrivs i kompletterande material. Antikropparna som användes var: Cdk5, CREB och BDNF (1: 500, Santa Cruz-bioteknik, Santa Cruz, CA) och fosfor-CREB (pCREB) (Ser 133) (1: 500, Cell Signaling Technology, Danvers, MA).
Receptor autoradiografi
Detaljerade metoder för autoradiografi beskrivs i kompletterande material. Ligander som användes var 2 nM H3 - SCH 23390 och 5 nM H3-spiperon (PerkinElmer, Boston, MA).
In situ hybridisering
Vävnadsbehandling och hybridisering utfördes såsom tidigare beskrivits (14). DARPP-32 sonden gavs vänligen av P. Greengard (Rockefeller University) och orexinsonden av J. Elmquist (University of Texas Southwestern Medical Center). Diabilder analyserade för DARPP-32 tilläts att filma för 3 dagar och diabilder analyserade för orexin fick appli-kation till film för 4-dagar. Kvantifiering av filmbilder utfördes såsom tidigare beskrivits (10).
QRT-PCR
RNA isolerades från VTA och uttryck av individuella gener som bedömdes med användning av TaqMan-genuttrycksanalyser (Applied Biosystems, Foster City, CA). Detaljerade metoder och statistiska analyser kan hittas i kompletterande material.
Beteendeanalyser
För att undersöka effekterna av belöningssensitivitet på diet-inducerade beteendeförändringar, togs en delmängd av möss ut från HF efter fyra veckors exponering och återvände till huschow (n = 9-kontroll, n = 8 ΔFosB). Tjugofyra timmar efter återkallandet utsattes möss för öppna fältprov i enlighet med vårt tidigare publicerade dietary withdrawal paradigm (10). Kort sagt placerades musen i mitten av öppenfältapparaten och övervakades i fem minuter. Totalt linjekors, fekal boli, tid i mitten och korsningar i mitten uppmättes.
Statistik
Alla data utom Western blots analyserades med användning av en tvåvägs ANOVA följt av Fishers PLSD-test med doxycyklinbehandling (ΔFosB-uttryck) och dietförhållande som de oberoende variablerna. För RT-PCR-analyser användes ett reducerat P-värde för att korrigera för flera jämförelser inom grupper av relaterade gener (se kompletterande material). Western-blotting analyserades med användning av en elevs t-test med doxycyklinbehandling som den oberoende variabeln, jämförande optiska densiteter inom samma blot. Alla data presenteras som medelvärde ± SEM.
Resultat
Basala biokemiska skillnader
För att belysa de molekylära vägarna som ligger till grund för den ökade belöningskänsligheten i ΔFosB-överuttryckande möss undersöktes nivåer av flera viktiga signalmolekyler i NAc. Det fanns en trend för ökade nivåer av Cdk5 i NAc hos ΔFosB-möss jämfört med djur som kullkamrat kontrollerades på doxycyklin (F = 5.1, P = 0.08; Fig. 1A). ΔFosB-möss uttryckte signifikant reducerade nivåer av pCREB (F = 7.4, P <0.05; Fig. 1B) såväl som totala nivåer av CREB (F = 5.4, P = 0.05; Fig. 1C). En signifikant minskning av BDNF observerades också i NAc hos ΔFosB-möss (F = 10.6, P <0.05; Fig. 1D).
Figur 1
Möss som överuttryckte ΔFosB uppvisade biokemiska markörer av reducerad dopamin-signalering i NAc
Matintag och kroppsvikt på hög fetthalt
Därefter undersökte vi effekterna av en naturligt givande HF-diet på förändringar i signalmolekyler i ΔFosB-överuttryckande möss. Det fanns inga skillnader mellan ΔFosB-möss och kontroller i matintag på varken hus eller HF. Det fanns emellertid en total minskning av kaloriintaget normaliserat till kroppsvikt vid exponering för HF som var specifikt för ΔFosB-mössen (F = 11.2, P <0.01; Fig. 2A). I slutet av sex veckors dietexponering vägde möss som fick HF väsentligt mer än de som hade chow-diet (F = 17.2, P <0.001) och ΔFosB-möss vägde totalt sett mindre än kontrollerna (F = 5.6, P <0.05; Fig. 2B). Denna effekt var specifik för skillnader mellan grupper på chow-dieten (P <0.05).
Figur 2
ΔFosB överuttryckta möss visade inga skillnader i matintag på antingen Chow eller High Fat (HF) diet
Biokemiska skillnader på fetthaltig diet
För att bestämma hur basala skillnader i NAc-signaler kan förändras med HF-diet undersöktes samma signalproteiner som studerades vid baslinjen hos djur som hade fått sex veckor av HF. Det fanns inga signifikanta skillnader i Cdk5-nivåer (Fig. 3A). Nivåerna av pCREB och totalt CREB var inte längre olika efter sex veckor av HF (Fig. 3B, C). Nivåerna av BDNF var signifikant förhöjda i FFB-möss efter sex veckors exponering av HF (F = 6.5, P = 0.05; Fig. 3D).
Figur 3
Högfett (HF) dietreducerade signaleringsskillnader observerade i NAc hos ΔFosB-överuttryckta möss
Dopaminreceptorautadiografi
Vi använde receptorautoradiografi för att bedöma om de ΔFosB-inducerade förändringarna i dopaminsignalering i NAc är relaterade till förändringar i dopaminreceptoruttryck (Fig. 4A). Kost med hög fetthalt verkade öka densiteten av D1-dopaminreceptorbindning något (P = 0.14), och denna skillnad var större hos ΔFosB-möss (fig. 4B). Det fanns också en trend mot en ökning av D1-bindningsområdet efter HF (P = 0.06), och post-hoc-testning visade att detta var signifikant i ΔFosB-mössen (P <0.05; Fig. 4C). Till skillnad från D1-receptorer, inga förändringar i D2-receptorbindningsdensitet (kontrollchow = 97.6 ± 6.9, kontroll HF = 101.1 ± 8.2, ΔFosB chow = 91.6 ± 1.0, ΔFosB HF = 94.8 ± 9.5) eller bindningsområde (kontrollchow = 47.3 ± 3.4, kontroll HF = 53.8 ± 6.0, ΔFosB chow = 51.9 ± 3.7, ΔFosB HF = 49.0 ± 3.3) i NAc observerades.
Figur 4
Hög fet diet (HF) ledde till förändringar i D1-dopaminreceptorbindning och DARPP-32-uttryck i nukleär accumbens (NAc) av ΔFosB-överuttryckta möss
DARPP-32-uttryck i NAc
In situ-hybridisering användes för att bestämma expressionsnivåer av DARPP-32 i NAc (fig. 4D). Kost med hög fetthalt ökade signifikant DARPP-32-uttrycket i denna hjärnregion (F = 5.1, P <0.05), och det fanns en signifikant interaktion mellan diet och ΔFosB-uttryck (F = 8.9, P <0.05), med ΔFosB-möss som visade en större dietinducerad förändring (fig. 4E). En basal skillnad i DARPP-32-expression mellan kontroll- och ΔFosB-möss avslöjades genom post hoc-testning (P <0.01), liksom en signifikant ökning av DARPP-32-uttryck i ΔFosB-möss på HF (P <0.01).
Genuttryck i VTA
QRT-PCR användes för att bedöma förändringar i genuttryck i VTA, inriktad på flera nyckelgener som tidigare var inblandade i regleringen av belöning. Alla prover normaliserades till β-aktin. För att säkerställa att β-aktinuttryck inte förändrades genom behandling genomfördes en separat analys för att jämföra β-aktin med en andra intern kontroll, GAPDH. Det fanns inga signifikanta skillnader i β-aktinuttryck (ΔCT-värden, β-aktin - GAPDH: kontrollchow = 2.29 ± 0.21, kontroll HF = 2.01 ± 0.04, ΔFosB chow = 2.32 ± 0.49, ΔFosB HF = 2.37 ± 0.10).
En trend för en interaktion mellan ΔFosB-expression och dietbehandling observerades för expression av tyrosinhydroxylas (F = 3.6, P <0.06; Fig. 5A). Sex veckors exponering för HF tycktes minska tyrosinhydroxylasuttrycket i kontrollmöss och öka expressionen i AFOSB-möss. En signifikant interaktion mellan ΔFosB-uttryck och dietexponering observerades för expression av dopamintransportören (F = 6.7, P <0.03; Fig. 5B). I likhet med tyrosinhydroxylas minskade exponering för HF dopamintransporteruttryck i kontrollmöss och signifikant ökat uttryck i ΔFosB-möss (P <0.05). Den grundläggande skillnaden i dopamintransportöruttryck mellan kontroll och ΔFosB-möss nådde inte betydelse (P = 0.16), men efter 6 veckor HF uttryckte ΔFosB-möss signifikant förhöjda nivåer av dopamintransportör jämfört med kontroller (P <0.05).
Figur 5
HF-exponering och ΔFosB-uttryck ledde till förändringar i uttryck av ett antal nyckelmolekyler i VTA
Det fanns en trend som indikerade en effekt av ökat ΔFosB-uttryck för att minska TrkB-nivåerna i VTA (F = 5.7, P <0.04; Fig. 5C). Även om det inte fanns några huvudeffekter på k-opioidreceptoruttryck, fanns det en trend mot minskat uttryck i ΔFosB-möss (P = 0.08; Fig. 5D). Uttryck av leptinreceptorn bestämdes också i VTA. En signifikant effekt av dietexponering hittades (F = 6.1, P <0.03), med HF som signifikant minskade nivåerna av leptinreceptorn i VTA i både AFOSB- och kontrollmöss (Fig. 5E). Uttryck av orexinreceptor 1 i VTA undersöktes också. Det fanns en signifikant effekt av diet på expression av orexinreceptorn (F = 9.0, P <0.02), med möss som exponerades för HF uttryckte högre nivåer i VTA (Fig. 5F). Det fanns också en trend för ΔFosB-möss att uttrycka övergripande högre nivåer av orexinreceptor 1 i denna hjärnregion (P <0.05).
Orexinuttryck i lateral hypotalamus
Vi mätte nivåerna av orexin i lateral hypothalamus, ursprunget till orexinerg innervering av VTA, genom hybridisering in situ (Fig. 6A). Det fanns en signifikant interaktion mellan ΔFosB-uttryck och dietexponering på orexinuttryck (F = 9.1, P <0.01), med HF som signifikant ökade orexinnivåerna i kontrollmöss (P <0.05) och minskat uttryck i ΔFosB-möss (Fig. 6B). Även om det inte fanns några signifikanta skillnader i orexinuttryck i basaltillståndet, efter 6 veckor HF, uttryckte ΔFosB-möss signifikant reducerade nivåer av orexin jämfört med kontroller (P <0.05).
Figur 6
Hög fetthalt (HF) diet hade differentialeffekter på orexinuttryck i kontroll (Ctrl) och ΔFosB överuttryckta möss
Var haviorala analyser
För att utvärdera förändringar i upphetsning och känslomässighet på grund av kostförändring exponerades möss för testet på öppna fält 24 timmar efter att HF-dieten hade dragits tillbaka (10). Totala linjekorsningar, som gjordes som ett mått på upphetsning, påverkades signifikant av ΔFosB-uttryck (F = 6.6, P <0.05) och diet (F = 4.6, P <0.05; Fig. 7A). ΔFosB-möss var mer aktiva i den nya miljön än sammandragningar, och post-hoc-testning visade att möss som drogs tillbaka från HF var signifikant mer aktiva än de som exponerades för chow (P <0.05). Fekal boli räknades som ett mått på ångestliknande beteende (10). Det fanns en huvudeffekt av ΔFosB-uttryck (F = 10.2, P <0.01), med ΔFosB-överuttryckande möss som producerade mer fekal boli i den nya miljön, särskilt i hushålls- och HF-tillbakadragningsgrupper (Fig. 7B). ΔFosB-möss som hölls på HF-diet producerade färre fekala boli än de som bibehölls vid chow och de som drogs tillbaka 24 timmar före testet. Kontrollmöss verkade inte påverkas av kosten. Det fanns inga signifikanta effekter av varken ΔFosB-uttryck eller diet på den tid som tillbringades i mitten av det öppna fältet (kontrollchow = 14.5 ± 3.1 sek, kontroll HF = 18.0 ± 3.2 sek, kontroll W / D = 15.4 ± 1.9 sek, ΔFosB chow = 16.9 ± 2.4 sek, ΔFosB HF = 13.1 ± 3.9 sek, ΔFosB W / D = 19.8 ± 2.6 sek).
Figur 7
Möss överuttryckande ΔFosB var mer känsliga för effekterna av hög fetthalt (HF) uttag
Diskussion
Vid behandling av fetma finns det ett kritiskt behov av att identifiera faktorer som påverkar känsligheten för överätning och viktökning. Hjärnans belöningsvägar spelar en viktig roll i motivationen för och responsen på välsmakande livsmedel och kostförändringar (6, 10, 15, 16). Eftersom orexigena och anorexigena signaler direkt kan påverka belöningssignalering via en hypotalamus-VTA-NAc-krets, kan utredning av gener som svarar på energirika välsmakande dieter inom belöningscentra ge nya terapeutiska mål vid fetmabehandling (17, 18). Därför undersökte vi biokemiska och molekylära markörer för belönings- och energibalanssignalering längs hypotalamus-VTA-NAc-kretsen som svar på en HF-diet hos ΔFosB-överuttryckande möss som en modell för ökad känslighet för förändringar i belöning (13, 19, 20), och den beteendemässiga känsligheten efter dietuttag. Vi antog att basal dysreglering av dopaminsignalering hos ΔFosB-möss skulle normaliseras av de belönande effekterna av en HF-diet, som omfattar skärningspunkten mellan energibalanssignaler och dopaminsystemet.
För att undersöka markörer som indikerar en dysreglering i dopaminsignalering i NAc, undersökte vi D1-receptornivåer och nedströms effektorer. Även om det inte fanns några signifikanta skillnader i D1-receptorbindning, fanns det en trend att HF-exponering ökade bindningsarean hos ΔFosB-möss. Detta är intressant eftersom induktion av ΔFosB av läkemedel och naturliga belöningar verkar dominera i den dynorfinpositiva subtypen av medelstora taggiga neuroner som primärt uttrycker D1-receptorer (9, 21). Nivåerna av det nedströms dopaminsignaleringsmålet pCREB var signifikant reducerade hos ΔFosB-möss, vilket stöder minskad D1-receptoraktivering i denna hjärnregion (22, 23). Intressant nog upptäckte vi också en signifikant minskning av totala CREB-nivåer hos ΔFosB-möss, vilket tyder på en ytterligare minskad kapacitet för dopaminsignaltransduktion som kan vara sekundär till feedback till följd av en förlängd minskning av pCREB (24). BDNF-uttryck regleras av pCREB, är förhöjt med D1-aktivering och är en viktig mediator av belöningsrelaterad neuroplasticitet i NAc (25, 26). Följaktligen upptäckte vi en signifikant minskning av BDNF-protein i NAc hos ΔFosB-möss.
Alla medelstora taggiga neuroner i NAc uttrycker DARPP-32 (27). Dess många nedströmseffektorer gör det till en viktig aktör i belöningsvägar (28), och det har implicerats i drogberoende och i andra sjukdomar som involverar dopaminsystemet, inklusive affektiva störningar och schizofreni (27, 29). Vi upptäckte djupa basala minskningar av DARPP-32-uttryck i NAc hos ΔFosB-möss. DARPP-32-uttryck regleras av BDNF, och därför kan det minskade uttrycket vara direkt relaterat till minskningarna av BDNF-nivåer som detekterats hos ΔFosB-möss (27, 29, 30). Även måttliga förändringar i fosforyleringstillståndet för DARPP-32 kan leda till betydande förändringar i intracellulär signalering inom NAc (27). Tidigare studier har rapporterat ingen förändring av DARPP-32-protein hos ΔFosB-möss efter 12 veckors borttagning från doxycyklin när en mer bred striatal bedömning genomfördes (31), vilket tyder på att effekterna av ΔFosB på DARPP-32 kan vara tids- och regionspecifika.
Vi antog att de dramatiska minskningarna av dopaminsignaleringsindex i NAc hos ΔFosB-möss sannolikt involverade förändringar i VTA:s dopaminprojektionsneuroner, även om ΔFosB inte är överuttryckt i dessa neuroner. Därför undersökte vi uttrycket av dopaminrelaterade gener i VTA, inklusive tyrosinhydroxylas och dopamintransportören. Nivåerna av tyrosinhydroxylas och dopamintransportör är positivt korrelerade med dopaminoutput. Det fanns en trend för ΔFosB-möss att uppvisa minskat tyrosinhydroxylas och en signifikant minskning av dopamintransportören, i linje med dysregleringen av dopaminsignalering i NAc . Eftersom dessa basala minskningar av dopaminrelaterade gener i VTA hos ΔFosB-möss förmodligen återspeglar förändrad feedback från NAc under långvarig ΔFosB-överuttryckning , undersökte vi uttrycket av BDNF-receptorn, TrkB, som en möjlig mekanism för NAc-feedback till VTA (32). I likhet med tyrosinhydroxylas och dopamintransportör visade TrkB-uttrycket också en trend att vara basalt reducerat hos ΔFosB-möss, vilket inte nådde någon signifikans vid korrigering för multipla jämförelser. BDNF-TrkB-komplexet kan transporteras retrogradt och verka inom VTA för att påverka lokalt genuttryck och främja celltillväxt och -underhåll (33). Vidare kan BDNF-aktivering av presynaptisk TrkB inom NAc direkt stimulera dopamin-neurotransmission (32), vilket stöder en underliggande minskning av dopaminsignalering hos dessa möss.
Dynorfinaktivering av κ-opioidreceptorer reglerar dopaminsignalering och är en annan mekanism genom vilken NAc ger feedback till VTA (34). Vi fann att κ-opioidreceptoruttryck i VTA visade en trend att minska hos ΔFosB-möss. Eftersom ΔFosB-överuttryck har visat sig minska dynorfinuttryck i NAc (20), har ΔFosB-möss sannolikt djupa minskningar av netto VTA κ- opioidaktivering. Även om dynorfinsignalering normalt utövar en hämmande effekt på dopaminneuroner (35), uppvisar råttor som visar ökad självadministrering av missbruksdroger minskade nivåer av dynorfin i NAc, vilket pekar på en roll för basalt reducerad dynorfinsignalering i att öka belöningskänsligheten (36, 37). Dysreglering av dynorfin-κ-opioidsystemet har kopplats till förvärv och ihållande av drogmissbruk, vilket stöder en kritisk balans mellan opioidsignalering i normaliseringen av dopaminvägar (38).
Baserat på den belöningsförmågan hos en energität HF-kost, antog vi att en dysreglering i dopamin- och opioidbelöningssignalering hos ΔFosB-möss skulle predisponera dessa möss för förbättrade belöningsresponser på en sådan kost, och därmed normalisera belöningssystemet via aktivering av hypotalamus-VTA-NAc-kretsen . Under den sex veckor långa dietexponeringen observerades inga skillnader i matintag mellan ΔFosB- och kontrollmöss, vilket tyder på att förändringarna i biokemiska och molekylära markörer för belöningssignalering hos ΔFosB-möss inte berodde på skillnader i konsumerade kalorier. Som förväntat försvagades basala skillnader som detekterades i pCREB-, total CREB-, BDNF-, DARPP-32- och κ-opioidreceptornivåer mellan ΔFosB- och kontrollmöss, troligen på grund av ökad dopaminproduktion hos ΔFosB-möss på HF (29, 39-41).
Undersökning av både tyrosinhydroxylas och dopamintransportören i VTA avslöjade överraskande motsatta svar hos ΔFosB- och kontrollmöss efter HF . Kontrollmöss visade en minskning av tyrosinhydroxylas- och dopamintransportöruttryck, medan ΔFosB-möss uppvisade ökat uttryck av båda dessa dopaminrelaterade gener. Intressant nog förändras tyrosinhydroxylasuttryck i VTA vid kronisk kokain- eller metamfetaminadministrering (42-44), vilket tyder på att ΔFosB-möss kan finna den naturliga belöningen av HF mer framträdande än kontrollmöss.
För att undersöka hur potentiell hypotalamisk inmatning till VTA kan omdirigera signaler som reflekterar energibalans, undersöktes också leptinreceptorns och orexinreceptorns 1-expressions. Cirkulerande leptinnivåer ökas av HF, och leptin kan i sin tur agera vid VTA för att ändra dopamin signaleringen (18, 45). VTA-leptinreceptoruttryck minskades på liknande sätt med HF i både FFB och kontrollmöss, i linje med liknande viktökning och dietintag medan den var på HF. Högt fett ökade också uttrycket av orexinreceptorn-1 i VTA hos både FFB och kontrollmöss. Orexin aktiverar dopaminneuroner i VTA, främjar VTA-plasticitet och ökar dopaminnivåerna i NAc (46-48). Hög fet diet har visat sig öka orexinuttrycket hos möss, enligt våra observationer (49, 50). Sålunda kan ökat uttryck av orexinreceptorn såväl som förändringar i leptinsignalering i VTA kunna främja kostbelöning i både ΔFosB och kontrollmöss, vilket stöder en dissociation mellan vägar som omdirigerar energibalanssignaler och de som är bundna direkt till belöning.
För att undersöka de stressprovocerande effekterna av belöningsavvänjning undersöktes möss i ett öppet fälttest 24 timmar efter att HF hade avlägsnats. ΔFosB-möss var mer känsliga för de akuta effekterna av avvänjning från föredragen kost och uppvisade ökad upphetsningsaktivitet och fekal boli-produktion i den nya öppna arenan jämfört med alla andra kontroll- och dietgrupper. ΔFosB-möss uppvisade också ett intressant beteendemönster i detta test som tyder på belönings- och stresskänslighet, där HF-kosten initialt minskade fekal boli-produktion i förhållande till födointag, och avvänjningen återigen ökade denna ångestrelaterade respons. Denna observerade ökning av öppet fältaktivitet korrelerade inte med förändringar i orexinuttryck, vilket tyder på ett samband med stressinducerad upphetsning som inte bara är en effekt av förändringar i orexinmedierad signalering. Sammantaget stöder dessa data vår hypotes att ΔFosB-möss skulle vara mer känsliga för de akuta effekterna av avvänjning från föredragen kost på grund av deras ökade belöningskänslighet.
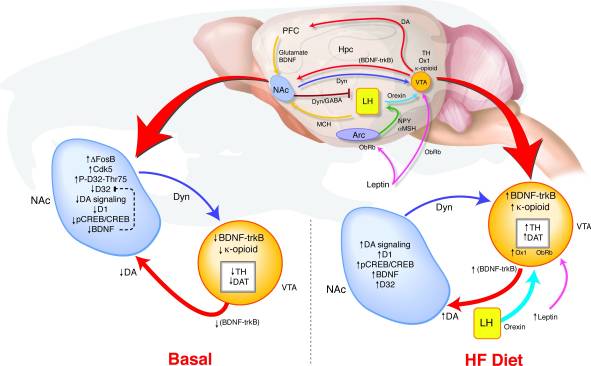
Hur leder långvarigt överuttryck av ΔFosB i NAc till sådana förändringar i beteende och belöningssignalering ? Vi har föreslagit en modell för VTA-coincidentdetektion där förändrad feedback från NAc och hypotalamus vidarebefordrar signaler angående belöningstillstånd för att bestämma regleringen av dopaminsystemet, vilket kan stödja ett samband mellan dysreglering av belöningsvägarna och en predisposition för fetma (Fig. 8). Under HF-exponering konvergerar flera insignaler som återspeglar både energibalans och belöningstillstånd på VTA. Ökningar i leptin- och orexinsignalering samt förändrad feedback från NAc till den laterala hypotalamus kan påverka hur dessa orexigena signaler svarar på HF hos ΔFosB-möss (17, 18, 45, 47, 51-53). Förhöjda BDNF-nivåer inducerade av fettrik kost kan ge belöningsfeedback till VTA, vilket ytterligare främjar förändringar i dopaminrelaterat genuttryck.
Figur 8
Hög fetthalt (HF) diet normaliserar dysregulerad belöningssignalering i ΔFosB-möss
Dessa resultat avgränsar molekylmarkörer av belöningsförebyggande känslighet och indikerar att långvarig dysregulering av dopaminsystemet kan predisponera en individ för missbruk och fetma. Vidare ger dessa data ett viktigt steg mot att identifiera potentiella nya terapeutiska mål vid behandling och förebyggande av fetma och andra störningar som kan centrera på belöningssystemet. I framtiden är det viktigt att undersöka hur detta system svarar mot borttagning av HF-kosten, samt att undersöka eventuella könsskillnader i känslighet för belöning och hög fetthaltsexponering.
Extramaterial
Supp. metoder
Klicka här för att visa. (61K, doc)
Erkännanden
Författarna vill tacka Cathy Steffen för hjälp med djuruppfödning och överföring. Detta arbete stöddes av ett bidrag från University of Pennsylvania Diabetes Center (DK019525) och genom bidrag från National Institute of Mental Health (R01 MH51399 och P50 MH66172) och National Institute on Drug Abuse (R01 DA07359).
fotnoter
Finansiella upplysningar: Alla författare förklarar att de inte har några biomedicinska ekonomiska intressen eller potentiella intressekonflikter.
Referensprojekt
1. Wadden TA, Berkowitz RI, Womble LG, Sarwer DB, Phelan S, Cato RK, Hesson LA, Osei SY, Kaplan R, Stunkard AJ. Randomiserad prövning av livsstilsmodifiering och farmakoterapi mot fetma. N Engl J Med. 2005; 353 (20): 2111-20 [PubMed].
2. Blendy JA, Strasser A, Walters CL, Perkins KA, Patterson F, Berkowitz R, Lerman C. Nedsatt nikotinbelöning i fetma: korsjämförelse i människa och mus. Psykofarmakologi (Berl) 2005
3. Franken IH, Muris P. Individuella skillnader i belöningssensitivitet är relaterade till matbehov och relativ kroppsvikt hos friska kvinnor. Aptit. 2005; 45 (2): 198-201 [PubMed].
4. Kelley AE, Berridge KC. Neurovetenskap av naturliga belöningar: relevans för beroendeframkallande droger. J Neurosci. 2002; 22 (9): 3306-11 [PubMed].
5. Cagniard B, Balsam PD, Brunner D, Zhuang X. Möss med kroniskt förhöjd dopamin uppvisar ökad motivation, men inte lärande, för en matbelöning. Neuropsychopharmacology. 2006; 31 (7): 1362-70 [PubMed].
6. Liang NC, Hajnal A, Norgren R. Sham matar majsolja ökar accumbens dopamin i råttan. Am J Physiol Regulator Integr Comp Physiol. 2006; 291 (5): R1236-9 [PubMed].
7. Mendoza J, Angeles-Castellanos M, Escobar C. Entrainment av en smaklig måltid inducerar matförväntande aktivitet och c-Fos uttryck i belöningsrelaterade områden i hjärnan. Neuroscience. 2005; 133 (1): 293-303 [PubMed].
8. Schroeder BE, Binzak JM, Kelley AE. En vanlig profil av prefrontal kortikal aktivering efter exponering för nikotin- eller chokladrelaterade kontextuella signaler. Neuroscience. 2001; 105 (3): 535-45 [PubMed].
9. Nestler EJ, Barrot M, Self DW. DeltaFosB: en hållbar molekylärbrytare för missbruk. Proc Natl Acad Sci USA A. 2001; 98 (20): 11042-6. [PMC gratisartikel] [PubMed]
10. Teegarden SL, Bale TL. Minskningar i kosttillskott ger ökad känslighet och risk för återfall av kost. Biolpsykiatri. 2007; 61 (9): 1021-9 [PubMed].
11. Olausson P, Jentsch JD, Tronson N, Nestler EJ, Taylor JR. dFosB i Nucleus Accumbens reglerar matförstärkt instrumentalt beteende och motivation. Journal of Neuroscience. 2006; 26 (36): 9196-9204 [PubMed].
12. Chen J, Kelz MB, Zeng G, Sakai N, Steffen C, Shockett PE, Picciotto MR, Duman RS, Nestler EJ. Transgena djur med inducerande, riktade genuttryck i hjärnan. Mol Pharmacol. 1998; 54 (3): 495-503 [PubMed].
13. Kelz MB, Chen J, Carlezon WA, Jr, Whisler K, Gilden L, Beckmann AM, Steffen C, Zhang YJ, Marotti L, Själv DW, Tkatch T, Baranauskas G, Surmeier DJ, Neve RL, Duman RS, Picciotto MR, Nestler EJ. Uttryck av transkriptionsfaktorn deltaFosB i hjärnan styr känsligheten för kokain. Natur. 1999; 401 (6750): 272-6 [PubMed].
14. Bale TL, Dorsa DM. Sexskillnader i och effekter av östrogen på oxytocinreceptorns messenger-ribonukleinsyrauttryck i den ventromediala hypotalamusen. Endokrinologi. 1995; 136 (1): 27-32 [PubMed].
15. Avena NM, Long KA, Hoebel BG. Sockerberoende råttor visar ökad respons på socker efter avhållande: Bevis på en sockerberoende effekt. Physiol Behav. 2005; 84 (3): 359-62 [PubMed].
16. Kommer MJ, Franzblau EB, Kelley AE. Nucleus accumbens mu-opioider reglerar intag av en fet diet genom aktivering av ett distribuerat hjärnanät. J Neurosci. 2003; 23 (7): 2882-8 [PubMed].
17. Zheng H, Patterson LM, Berthoud HR. Orexinsignalering i det ventrala tegmentala området krävs för hög fetthalt, som induceras av opioidstimulering av kärnans accumbens. J Neurosci. 2007; 27 (41): 11075-82 [PubMed].
18. Hommel JD, Trinko R, Sears RM, Georgescu D, Liu ZW, Gao XB, Thurmon JJ, Marinelli M, DiLeone RJ. Leptinreceptorsignalering i dopaminneuroner i midhjärnan reglerar utfodring. Nervcell. 2006; 51 (6): 801-10 [PubMed].
19. Colby CR, Whisler K, Steffen C, Nestler EJ, Self DW. Striatal celltypsspecifik överuttryck av DeltaFosB ökar incitamentet för kokain. J Neurosci. 2003; 23 (6): 2488-93 [PubMed].
20. Zachariou V, Bolanos CA, Selley DE, Theobald D, Cassidy MP, Kelz MB, Shaw-Lutchman T, Berton O, Sim-Selley LJ, Dileone RJ, Kumar A, Nestler EJ. En viktig roll för DeltaFosB i kärnan accumbens i morfin åtgärder. Nat Neurosci. 2006; 9 (2): 205-11 [PubMed].
21. Lee KW, Kim Y, Kim AM, Helmin K, Nairn AC, Greengard P. Kokaininducerad dendritisk ryggradssbildning i D1- och D2-dopaminreceptorinnehållande mellanspinniga neuroner i nukleinsymboler. Proc Natl Acad Sci USA A. 2006; 103 (9): 3399-404. [PMC gratisartikel] [PubMed]
22. Blendy JA, Maldonado R. Genetisk analys av narkotikamissbruk: rollen av cAMP-responselementbindande protein. J Mol Med. 1998; 76 (2): 104-10 [PubMed].
23. Nestler EJ. Molecular mechanisms of drug addiction. Neuro. 2004; 47 1: 24-32. [PubMed]
24. Tanis KQ, Duman RS, Newton SS. CREB Bindning och aktivitet i hjärnan: Regional specificitet och induktion genom elektrokonvulsiv beslag. Biolpsykiatri. 2007
25. Kumar A, Choi KH, Renthal W, Tsankova NM, Theobald DE, Truong HT, Russo SJ, Laplant Q, Sasaki TS, Whistler KN, Neve RL, Self DW, Nestler EJ. Chromatin remodeling är en nyckelmekanism som ligger bakom kokaininducerad plasticitet i striatum. Nervcell. 2005; 48 (2): 303-14 [PubMed].
26. Graham DL, Edwards S, Bachtell RK, Dileone RJ, Rios M, Self DW. Dynamisk BDNF-aktivitet i kärnan accumbens med kokainanvändning ökar självadministration och återfall. Nat Neurosci. 2007; 10 (8): 1029-37 [PubMed].
27. Svenningsson P, Nairn AC, Greengard P. DARPP-32 medierar åtgärderna av flera missbruksmissbruk. Aaps J. 2005; 7 (2): E353-60. [PMC gratisartikel] [PubMed]
28. Palmer AA, Verbitsky M, Suresh R, Kamens HM, Reed CL, Li N, Burkhart-Kasch S, McKinnon CS, Belknap JK, Gilliam TC, Phillips TJ. Genuttrycksskillnader hos möss som valts avvikande för metamfetaminkänslighet. Mammgenom. 2005; 16 (5): 291-305 [PubMed].
29. Bogush A, Pedrini S, Pelta-Heller J, Chan T, Yang Q, Mao Z, Sluzas E, Gieringer T, Ehrlich ME. AKT och CDK5 / p35 medierar hjärnavledad neurotrof faktorinduktion av DARPP-32 i medelstora snygga neuroner in vitro. J Biol Chem. 2007; 282 (10): 7352-9 [PubMed].
30. Benavides DR, Bibb JA. Rollen av Cdk5 i drogmissbruk och plasticitet. Ann NY Acad Sci. 2004; 1025:. 335-44 [PubMed]
31. Bibb JA, Chen J, Taylor JR, Svenningsson P, Nishi A, Snyder GL, Yan Z, Sagawa ZK, Ouimet CC, Nairn AC, Nestler EJ, Greengard P. Effekter av kronisk exponering för kokain regleras av neuronproteinet Cdk5. Natur. 2001; 410 (6826): 376-80 [PubMed].
32. Blochl A, Sirrenberg C. Neurotropiner stimulerar frisättningen av dopamin från råttmemencefaliska neuroner via Trk- och p75Lntr-receptorer. J Biol Chem. 1996; 271 (35): 21100-7 [PubMed].
33. Berton O, McClung CA, Dileone RJ, Krishnan V, Renthal W, Russo SJ, Graham D, Tsankova NM, Bolanos CA, Rios M, Monteggia LM, Self DW, Nestler EJ. BDNF: s viktig roll i den mesolimbiska dopaminvägen i social nederlagsspänning. Vetenskap. 2006; 311 (5762): 864-8 [PubMed].
34. Nestler EJ, Carlezon WA., Jr Den mesolimbiska dopaminbelöningskretsen i depression. Biolpsykiatri. 2006; 59 (12): 1151-9 [PubMed].
35. Ford CP, Beckstead MJ, Williams JT. Kappa opioidinhibering av somatodendritiska dopaminhämmande postsynaptiska strömmar. J Neurophysiol. 2007; 97 (1): 883-91 [PubMed].
36. Nylander I, Vlaskovska M, Terenius L. Hjärndynorfin- och enkefalinsystem i Fischer- och Lewis-råttor: effekter av morfintolerans och uttag. Brain Res. 1995; 683 (1): 25-35 [PubMed].
37. Nylander I, Hyytia P, Forsander O, Terenius L. Skillnader mellan alkoholföreträdande (AA) och alkoholavvikande (ANA) råttor i prodynorfin- och proenkefalinsystemen. Alkoholklin Exp Exp. 1994; 18 (5): 1272-9 [PubMed].
38. Kreek MJ. Kokain, dopamin och det endogena opioidsystemet. J Addict Dis. 1996; 15 (4): 73-96 [PubMed].
39. Carlezon WA, Jr, Duman RS, Nestler EJ. CREBs många ansikten. Trender Neurosci. 2005; 28 (8): 436-45 [PubMed].
40. Dudman JT, Eaton ME, Rajadhyaksha A, Macias W, Taher M, Barczak A, Kameyama K, Huganir R, Konradi C. Dopamin D1-receptorer medierar CREB-fosforylering via fosforylering av NMDA-receptorn vid Ser897-NR1. J Neurochem. 2003; 87 (4): 922-34 [PubMed].
41. Själv DW. Reglering av läkemedelsbehandling och -sökande beteenden genom neuroadaptations i mesolimbic dopaminsystemet. Neuro. 2004; 47 1: 242-55. [PubMed]
42. Beitner-Johnson D, Nestler EJ. Morfin och kokain utövar vanliga kroniska verkningar på tyrosinhydroxylas i dopaminerge hjärnbelöningsregioner. J Neurochem. 1991; 57 (1): 344-7 [PubMed].
43. Lu L, Grimm JW, Shaham Y, Hope BT. Molecular neuroadaptations i accumbens och ventral tegmental area under de första 90 dagarna av tvungen abstinens från kokain selfadministration hos råttor. J Neurochem. 2003; 85 (6): 1604-13 [PubMed].
44. Shepard JD, Chuang DT, Shaham Y, Morales M. Effekt av metamfetamin-självadministrering på tyrosinhydroxylas- och dopamintransportörnivåer i råttens mesolimbiska och nigrostriatala dopaminvägar. Psykofarmakologi (Berl) 2006; 185 (4): 505-13. [PubMed]
45. Fulton S, Pissios P, Manchon RP, Stiles L, Frank L, Pothos EN, Maratos-Flier E, Flier JS. Leptinreglering av mesoaccumbens dopaminvägen. Nervcell. 2006; 51 (6): 811-22 [PubMed].
46. Narita M, Nagumo Y, Miyatake M, Ikegami D, Kurahashi K, Suzuki T. Inverkan av proteinkinas C i den orexininducerade höjningen av extracellulära dopaminnivåer och dess givande effekt. Eur J Neurosci. 2007; 25 (5): 1537-45 [PubMed].
47. Narita M, Nagumo Y, Hashimoto S, Khotib J, Miyatake M, Sakurai T, Yanagisawa M, Nakamachi T, Shioda S, Suzuki T. Direkt involvering av orexinerga system vid aktivering av mesolimbisk dopaminväg och relaterat beteende inducerat av morfin. J Neurosci. 2006; 26 (2): 398-405 [PubMed].
48. Borgland SL, Taha SA, Sarti F, Fields HL, Bonci A. Orexin A i VTA är avgörande för induktion av synaptisk plasticitet och beteendets sensibilisering mot kokain. Nervcell. 2006; 49 (4): 589-601 [PubMed].
49. Park ES, Yi SJ, Kim JS, Lee HS, Lee IS, Seong JK, Jin HK, Yoon YS. Förändringar i orexin-A- och neuropeptid Y-uttryck i hypotalamus hos de fasta och högfettiga dietmatade råttorna. J Vet Sci. 2004; 5 (4): 295-302 [PubMed].
50. Wortley KE, Chang GQ, Davydova Z, Leibowitz SF. Peptider som reglerar matintag: Örexin-genuttryck ökas under tillstånd av hypertriglyceridemi. Am J Physiol Regulator Integr Comp Physiol. 2003; 284 (6): R1454-65 [PubMed].
51. Zheng H, Corkern M, Stoyanova I, Patterson LM, Tian R, Berthoud HR. Peptider som reglerar matintag: appetit-inducerande accumbens manipulation aktiverar hypotalamiska orexin neuroner och hämmar POMC neuroner. Am J Physiol Regulator Integr Comp Physiol. 2003; 284 (6): R1436-44 [PubMed].
52. Baldo BA, Gual-Bonilla L, Sijapati K, Daniel RA, Landry CF, Kelley AE. Aktivering av en subpopulation av orexin / hypokretinhaltiga hypotalamiska neuroner genom GABAA-receptor-medierad inhibering av kärnans accumbens skal, men inte genom exponering för en ny miljö. Eur J Neurosci. 2004; 19 (2): 376-86 [PubMed].
53. Harris GC, Wimmer M, Aston-Jones G. En roll för laterala hypotalamiska orexinneuroner i belöningssökande. Natur. 2005; 437 (7058): 556-9 [PubMed].