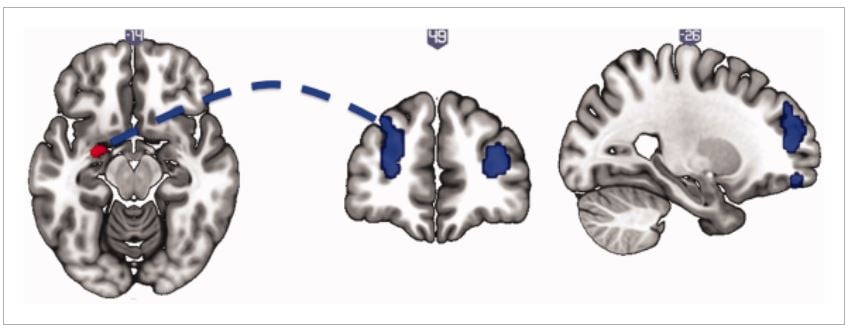
KOMMENTARER: Även om studien använder termen "Kompulsivt sexuellt beteende (CSB)", var försökspersonerna porrberoende ( se detta pressmeddelande ). Jämfört med friska kontrollpersoner hade CSB-försökspersoner ökad vänster amygdala-volym och minskad funktionell anslutning under vila mellan vänster amygdala och bilateral dorsolateral prefrontal cortex DLPFC. Författarna drar slutsatsen:
Våra nuvarande fynd markerar ökade volymer i en region som är inblandade i motiverande salience och lägre vilande tillståndsanslutning av prefrontala top-down regulatoriska kontrollnät. Förstöring av sådana nätverk kan förklara avvikande beteendemönster mot miljömässigt framträdande belöning eller förbättrad reaktivitet mot framträdande incitamentsteg. Även om våra volymetriska fynd står i motsats till de som gäller för substansanvändning (SUD), kan dessa resultat återspegla skillnader som en funktion av de neurotoxiska effekterna av kronisk drogexponering.
Översättningsfynd #1): ”Mindre funktionell konnektivitet mellan amygdala och dorsolateral prefrontal cortex.” Amygdala spelar en nyckelroll i bearbetningen av känslor, inklusive vår reaktion på stress. Amygdala är starkt involverad i många aspekter av beroende, såsom begär, signalreaktivitet och abstinenssymtom. Minskad funktionell konnektivitet mellan amygdala och prefrontal cortex är i linje med substansberoende. Man tror att sämre konnektivitet minskar prefrontal cortex kontroll över en användares impuls att engagera sig i det beroendeframkallande beteendet.
Översättningsfynd #2): "Ökad amygdala-volym" (vilket betyder mer grå substans). De flesta studier av drogberoende rapporterar en mindre amygdala hos missbrukare (mindre grå substans). Denna studie tyder på att läkemedelstoxicitet kan leda till mindre grå substans och därmed minskad amygdala-volym hos drogmissbrukare. Detta spelar utan tvekan en roll. Det måste noteras att amygdalan är konsekvent aktiv under porrtittande, särskilt under den första exponeringen för en sexuell signal. Till exempel, att klicka från flik till flik eller söka efter en video eller bild skulle lysa upp amygdalan. Kanske leder den ständiga sexuella nyheten och sökandet och sökandet till en unik effekt på amygdalan hos tvångsmässiga porranvändare.
Alternativ förklaring till större amygdalavolym hos porrmissbrukare: Åratal av tvångsmässig porranvändning kan säkert vara en stressfaktor. Dessutom var dessa CSB-personer inte bara porrmissbrukare; de upplevde också allvarliga negativa konsekvenser till följd av porranvändning (förlust av jobb, relationsproblem, utveckling av porrinducerad ED). Här är en viktig punkt: Kronisk social stress är relaterad till ökad amygdalavolym :
Även om de exakta mekanismerna för plasticitet fortfarande inte är helt förstådda, verkar måttlig till svår stress öka tillväxten av flera sektorer av amygdala , medan effekterna i hippocampus och prefrontala cortex tenderar att vara motsatta.
Vi betraktar ovanstående fynd mot bakgrund av denna studie från 2015 som fann att "sexberoende" har en hyperaktiv HPA-axel (ett överaktivt stresssystem). Kan den kroniska stressen relaterad till porr-/sexberoende, tillsammans med faktorer som gör sex unikt, leda till större amygdalavolym? Slutligen kan lägre amygdalavolym vara ett redan existerande tillstånd hos alkoholister, eftersom avkomma i familjer med hög risk för alkoholism har mindre amygdalor.
LÄNKAR TILL FULLSTUDIE
Casper Schmidt, 1,2,3 Laurel S. Morris, 1,4 Timo L. Kvamme, 1,2,3 Paula Hall, 5 Thaddeus Birchard, 5 och Valerie Voon 1,4,6*
- Första publicerad: 27 October 2016 Full publikationshistorik
- DOI: 10.1002 / hbm.23447 Visa / spara citat
Författarna förklarar att de inte har någon intressekonflikt att förklara.
Abstrakt
Bakgrund
Kompulsivt sexuellt beteende (CSB) är relativt vanligt och associerat med signifikant personlig och social dysfunktion. Den underliggande neurobiologin är fortfarande dåligt förstådd. I föreliggande studie undersöks hjärnvolymer och vilande tillståndsfunktionell anslutning i CSB jämfört med matchade friska frivilliga (HV).
Metoder
Strukturella MR-data (MPRAGE) samlades in i 92-ämnen (23 CSB-män och 69-ålders-matchad manlig HV) och analyserades med hjälp av voxelbaserad morfometri. Resten av statisk funktionell MR-data med användning av multi-echo planar sekvens och oberoende komponentanalys (ME-ICA) samlades in i 68-ämnen (23 CSB-ämnen och 45-ålders-matchade HV).
Resultat
CSB-individer uppvisade större volymer av grå substans i vänster amygdala (korrigerad för liten volym, Bonferroni-justerad P < 0.01) och minskad funktionell anslutning i vilotillstånd mellan vänster amygdalafrö och bilateral dorsolateral prefrontal cortex (helhjärnan, klusterkorrigerad FWE P < 0.05) jämfört med HV.
Slutsatser
CSB är förknippat med förhöjda volymer i limbiska regioner som är relevanta för motivationssalience och känslomässig behandling och nedsatt funktionell anslutning mellan prefrontal kontrollreglering och limbiska regioner. Framtida studier ska syfta till att bedöma longitudinella åtgärder för att undersöka huruvida dessa fynd är riskfaktorer som föregår beteendet eller är konsekvenser av beteenden.
Förkortningar
- ACC främre cingulära cortex
- CSB tvångsmässigt sexuellt beteende
- CSF cerebrospinalvätska
- DLPFC dorsolateral prefrontal cortex
- GM grå substans
- GLM generell linjär modell
- HV friska frivilliga
- MPRAGE-magnetisering framställt gradient-eko
- OFC-orbitofrontal cortex
- ROI region av intresse
- SPM Statistisk Parametrisk Kartläggning
- TR repetitionstid
- TE ekotid
- VBM voxelbaserad morfometri
- WM vit materia.
INLEDNING
Tvångsmässigt sexuellt beteende (CSB), även känt som hypersexuell störning eller sexuellt beroende, är relativt vanligt (uppskattat till 3–6 %) [Kraus et al., 2016 ] och förknippat med betydande stress och psykosociala funktionsnedsättningar, inklusive att kännetecknas av begär, impulsivitet samt social och yrkesmässig funktionsnedsättning [Kraus et al., 2016 ]. Nyligen genomförda studier har fokuserat på att förstå underliggande neurobiologiska korrelat [Kraus et al., 2016 ] även om bristen på studier begränsar vår förståelse av underliggande mekanismer och hur vi kan konceptualisera dessa störningar. CSB har konceptualiserats som antingen en impulskontrollstörning eller ett beteendeberoende [Kraus et al., 2016 ]. Även om kriterier för hypersexuell störning föreslogs för DSM-5 och validerades i fältstudier [Reid et al., 2012 ], inkluderades denna störning, tillsammans med den patologiska användningen av internet eller videospel, inte i huvudavsnittet av DSM-5, delvis på grund av begränsad data om tillstånden. Således är ytterligare studier om tvångsmässigt sexuellt utnyttjande (CSB) nödvändiga för att utveckla en bättre förståelse av dessa störningar. Även om CSB kan ha en rad olika beteenden, fokuserar vi här på en grupp som rapporterar övervägande svårigheter med tvångsmässigt pornografibruk. Vi har använt termen CSB utifrån antagandet att "tvångsmässigt" beskriver den repetitiva fenomenologin och inte är avsedd att antyda några mekanistiska eller etiologiska antaganden.
Vi genomförde en litteraturgenomgång om beteendeberoende med hjälp av antingen voxelbaserad morfometri (VBM) eller kortikal tjocklek. Vi använde följande sökord på PubMed ( http://www.ncbi.nlm.nih.gov/pubmed ): '[(“voxelbaserad morfometri” eller “kortikal tjocklek”) och],' följt av antingen “[patologiskt spelberoende]”, “[internetberoende]”, “[internetstörning]”, “” eller “[spelberoende]”. Totalt hittades 13 studier inom beteendeberoende relaterade till spelande, internetanvändning eller videospel som bedömde antingen VBM eller kortikal tjocklek. Litteraturgenomgången presenteras i tabell 1 och diskuteras nedan.
Tabell 1. Litteraturöversikt av volymetriska och kortikala tjockleksstudier av beteendemissbruk
|
Titel |
Behavioral missbruk |
Ämnen (P / HV) |
Mäta |
Regioner inblandade |
|---|---|---|---|---|
|
||||
| [Grant et al., 2015] | Gambling störning | 16/17 | Kortikal tjocklek | Minskad kortikal tjocklek i r-SFC, RMFC, MOFC, PCG och bl-IPC |
| [Joutsa et al., 2011] | Patologiskt spelande | 12/12 | Voxelbaserad morfometri | Inga volymetriska skillnader i GM eller WM mellan HV och patienter |
| [Koehler et al., 2013] | Patologiskt spelande | 20/21 | Voxelbaserad morfometri | Ökad GM-volym i bl-VS och r-PFC |
| [van Holst et al., 2012] | Problemspel | 40/54 | Voxelbaserad morfometri | Inga volymetriska skillnader i GM eller WM mellan problemspelare och HV |
| [Hong et al., 2013] | internet missbruk | 15/15 | Kortikal tjocklek | Minskad kortikal tjocklek i r-LOFC |
| [Yuan et al., 2011] | internet missbruk | 18/18 | Voxelbaserad morfometri | Minskad GM-volym i DLPFC, SMA, OFC, CB, RACC |
| [Zhou et al., 2011] | internet missbruk | 15/18 | Voxelbaserad morfometri | Minskad GM-densitet i l-ACC, PCC, IC, LING |
| [Lin et al., 2014] | Internet spelberoende | 35/36 | Voxelbaserad morfometri | Minskad GM-densitet i IFG, l-CG, IC och r-HIPP
Minskad WM-densitet i IFG, IC, IPC, ACC |
| [Sun et al., 2014] | Internet spelberoende | 18/21 | Voxelbaserad morfometri | Ökad GM-volym i r-ITG, MTG, PHG
Minskad GM-volym i l-PrCG |
| [Wang et al., 2015] | Internet spel störning | 28/28 | Voxelbaserad morfometri | Minskad GM-volym i ACC, PCUN, SMA, SPC och l-DLPFC, IC, CB |
| [Cai et al., 2015] | Internet spel störning | 27/30 | Subcortical volym, FreeSurfer | Ökade volymer av CN och VS |
| [Weng et al., 2013] | Online-missbruk | 17/17 | Voxelbaserad morfometri | Minskad GM-volym i r-OFC, SMA och bl-IC |
| [Yuan et al., 2013] | Online-missbruk | 18/18 | Kortikal tjocklek | Ökad kortikal tjocklek i l-PrCG, PCUN, MFC, ITG, MTG
Minskad kortikal tjocklek i l-LOFC, IC, r-PCG, IPC |
Insikt i neurala störningar vid missbruk kommer från studier av substansanvändningsstörningar (SUD). Individer med SUD uppvisar minskningar i kortikal hjärnvolym och tjocklek, särskilt i prefrontala kortikala regioner som tjänar flexibel beteendekontroll. En nyligen genomförd metaanalys av 9 studier och 296 alkoholberoende individer fann signifikant minskade prefrontala grå substansvolymer (GM), inklusive främre cingulära cortex (ACC) [Xiao et al., 2015 ], där frontal kortikal GM-volym var negativt associerad med livstidsalkoholkonsumtion [Taki et al., 2006 ]. Prefrontala GM-volymer minskade på liknande sätt hos kokainberoende individer, inklusive i orbitofrontal cortex (OFC) [Rando et al., 2013 ; Tanabe et al., 2009 ], främre prefrontala cortex [Rando et al., 2013 ] och ACC [Connolly et al., 2013 ], den senare associerad med åratal av droganvändning [Connolly et al., 2013 ].
Gruppskillnader i kortikala volymer och tjocklek har varit mindre tydliga i beteendemässiga beroendeframkallanden (ses i tabell 1). Tre små studier av spelstörning visade inkonsekventa fynd med antingen minskad kortikal tjocklek i flera prefrontala och parietala regioner [Grant et al., 2015], ökade volymer i rätt prefrontal cortex [Koehler et al., 2013] eller inga gruppskillnader [Joutsa et al., 2011]. I en stor studie av mindre allvarliga problemspelare observerades inga gruppskillnader i hjärnvolymer [van Holst et al., 2012]. En liten studie i internetberoende visade lägre kortikal tjocklek i OFC [Hong et al., 2013], med en annan rapporterande lägre volym i dorsolateral prefrontal cortex (DLPFC) [Yuan et al., 2011] och två studier som antyder lägre ACC-volymer [Yuan et al., 2011; Zhou et al., 2011]. Två små studier i internetspelstörningar rapporterade minskade volymer i OFC [Weng et al., 2013; Yuan et al., 2013], och två större studier rapporterade mindre volymer i cingulär cortex [Lin et al., 2014; Wang et al., 2015] med enkla studier som rapporterar minskningar i DLPFC [Wang et al., 2015], sämre frontal [Lin et al., 2014], överlägsen parietal [Wang et al., 2015] och sämre parietal [Yuan et al., 2013] cortices. Med avseende på subkortiska strukturer rapporterade en liten studie högre ventral striatal (VS) volymer i spelstörning [Koehler et al., 2013] utan subkortiska skillnader rapporterade i övriga studier. I internetspelstörning var resultaten lika inkonsekventa med antingen större parahippocampala [Sun et al., 2014], lägre hippocampal [Lin et al., 2014] eller inga skillnader [Wang et al., 2015; Weng et al., 2013]. En studie med en rimlig provstorlek som fokuserar på subkortiska volymer rapporterade större caudat- och VS-volymer associerade med kognitiva kontrollunderskott [Cai et al., 2015]. Sammantaget är resultaten av kortikala eller subkortiska abnormiteter i spelstörning mycket inkonsekventa. I motsats härtill rapporterar rapporter om kortikala avvikelser i internetanvändning eller internetspel mer konsekvent minskat volymer med minskad ACC- och OFC-volym replikeras över minst två studier.
Hittills finns det sparsamma bevis för strukturella neurala förändringar hos individer med CSB. Studier av friska individer med överdriven pornografianvändning utan en diagnos av CSB visar lägre GM-volymer i höger caudatus [Kühn och Gallinat, 2014 ]. En liten diffusions-MRI-studie av individer med CSB ( N = 8 per grupp) visade minskad genomsnittlig diffusivitet i övre frontala vita substansområden (WM) jämfört med HV [Miner et al., 2009 ]. Med avseende på funktionell aktivitet visar manliga HV förbättrade habitueringsprocesser med BOLD-aktivitet i nedre vänstra putaminalregionen gentemot statiska erotiska bilder [Kühn och Gallinat, 2014 ] och lägre sen positiv potential gentemot explicita bilder [Prause et al., 2015 ]. Däremot framkallade explicita sexuella videor i en uppgiftsbaserad fMRI-studie som jämförde CSB med HV högre BOLD-svar i VS, amygdala och dorsala ACC i CSB [Voon et al., 2014 ]. Funktionell konnektivitet mellan dessa regioner korrelerade med ett index för sexuell lust eller "vilja" men inte "gillande" hos CSB-individer, vilket tyder på rollen av incitamentsmotivation, parallellt med substansberoende. På liknande sätt, i en annan studie av internetpornografiberoende, var den föredragna sexuella bilden associerad med större ventral striatal aktivitet och korrelerade endast med självrapporterade symtom på internetpornografiberoende och inte med andra mått på sexuellt beteende eller depression [Brand et al., 2016 ]. En annan nyligen genomförd studie visar också att individer med problematiskt hypersexuellt beteende upplevde mer frekvent och ökad sexuell lust under exponering för sexuella stimuli, och att större aktivering observerades i caudatus, inferior parietallob, dorsal anterior cingulate gyrus, thalamus och DLPFC i denna grupp [Seok och Sohn, 2015 ]. CSB-individer visar vidare större tidig uppmärksamhetsbias till explicita sexuella stimuli [Mechelmans et al., 2014 ] som korrelerade med valpreferenser för signaler betingade av sexuella bilder [Banca et al., 2016 ]. Som svar på upprepad exponering av statiska erotiska bilder uppvisade CSB-individer större tillvänjning i den dorsala ACC till sexuella utfall, vilket korrelerade med valpreferenser för nya sexuella bilder [Banca et al., 2016 ], en effekt som kan förklaras av endera tillvänjningen men som också kan vara förenlig med konceptet tolerans i missbruk.
Den aktuella studien undersöker volumetrisk GM i CSB och granskar aktuell litteratur om volumetriska och kortikala tjockleksstudier vid spelberoende och vid internet- och spelanvändningsstörningar. Vi undersöker också funktionell konnektivitet i vilotillstånd hos individer med CSB och matchad HV med en ny multi-echo planar sequence and independent components analysis (ME-ICA) där BOLD-signaler identifieras som oberoende komponenter med linjär ekotids (TE)-beroende signalförändring medan icke-BOLD-signaler identifieras som TE-oberoende komponenter [Kundu et al., 2012 ]. Vi förväntar oss ett stört nätverk av salience- och belöningsrelaterade system som understöds av amygdala, VS och dorsal ACC.
METODER
Deltagare
CSB-patienter rekryterades via internetbaserade annonser och från remisser från terapeuter. Åldersmatchade manliga HV rekryterades från samhällsbaserade annonser i East Anglia-området. Alla CSB-patienter intervjuades av en psykiater för att bekräfta att de uppfyllde diagnoskriterierna för CSB (uppfyllde föreslagna diagnoskriterier för både hypersexuell störning [Kafka, 2010 ; Reid et al., 2012 ] och sexuellt beroende [Carnes et al., 2007 ], med fokus på tvångsmässigt bruk av sexuellt explicit material online. Detta bedömdes med hjälp av en modifierad version av Arizona Sexual Experiences Scale (ASES) [Mcgahuey et al., 2011 ], där frågorna besvarades på en skala från 1–8, där högre poäng representerade större subjektiv funktionsnedsättning. Med tanke på signalernas natur var alla CSB-patienter och HV män och heterosexuella. Alla HV var åldersmatchade (±5 år) med CSB-patienter. Försökspersonerna screenades också för kompatibilitet med MR-miljön som vi har gjort tidigare [Banca et al., 2016 ; Mechelmans et al., 2014 ; Voon et al., 2014 ]. Exklusionskriterier inkluderade att vara under 18 år, med en historia av substansmissbruk, regelbunden användning av illegala substanser (inklusive cannabis) och en allvarlig psykiatrisk störning, inklusive aktuell måttlig till svår egentlig depression eller tvångssyndrom, eller historia av bipolär sjukdom eller schizofreni (screenad med Mini International Neuropsychiatric Inventory) [Sheehan et al., 1998 ]. Andra tvångsmässiga eller beteendemässiga beroenden var också undantagna. Försökspersonerna bedömdes av en psykiater med avseende på problematisk användning av onlinespel eller sociala medier, patologiskt spelberoende eller tvångsmässigt shoppingbeteende, ADHD i barndomen eller vuxen ålder och diagnosen hetsätningsstörning. Försökspersonerna fyllde i UPPS-P Impulsive Behavior Scale [Whiteside och Lynam, 2001 ] för att bedöma impulsivitet och Beck Depression Inventory [Beck et al., 1961 ] för att bedöma depression. Två av 23 CSB-försökspersoner tog antidepressiva medel eller hade samsjuklighet med generaliserat ångestsyndrom och social fobi ( N = 2) eller social fobi ( N = 1) eller en barndomshistoria av ADHD ( N = 1). Skrivet Informerat samtycke erhölls och studien godkändes av University of Cambridge Research Ethics Committee. Försökspersonerna fick betalt för sitt deltagande.
Neuroimaging
Datainsamling och bearbetning
Strukturell.
Strukturella bilder samlades in, inklusive full magnetiseringsberedd gradienteko (MPRAGE) med hjälp av en Siemens Tim Trio 3T-scanner med en 32-kanalhuvudspole med en T1-vägd MPRAGE-sekvens (176 sagittalskivor, 9-minutskanningar, upprepningstid (TR) = 2,500 ms; ekotid (TE) = 4.77 ms; inversionstid = 1,100 ms; förvärvsmatris = 256 × 256 × 176; vridvinkel = 7 °; voxelstorlek 1 × 1 × 1 mm). Skanning ägde rum vid The Wolfson Brain Imaging Center vid University of Cambridge.
Strukturdata bearbetades med Statistical Parametric Mapping (SPM8; http://www.fil.ion.ucl.ac.uk/spm ) (Wellcome Trust Centre for Neuroimaging, London, Storbritannien). Anatomiska bilder omorienterades manuellt, med origo placerat vid den främre kommissuren. Bilderna segmenterades (med hjälp av New Segment for SPM) i GM, WM och cerebrospinalvätska (CSF) baserat på standardiserade vävnadssannolikhetskartor för varje vävnadstyp. De tre vävnadsklassvolymerna summerades för att producera en uppskattad total intrakraniell volym. En anpassad mall skapades med DARTEL [Ashburner, 2007 ], som definierar de parametrar som är nödvändiga för att anpassa varje individs nativa GM-bild till ett gemensamt utrymme, på ett iterativt sätt. Denna DARTEL-mall registrerades sedan på vävnadssannolikhetskartorna med affina transformationer, vilket förde bilderna in i MNI-utrymmet. Bilderna utjämnades spatialt med en full bredd vid halva maximala kärnan på 8 mm³.
Viloläge.
Resten av statens fMRI-data förvärvades för 10-minuter med ögon öppna med en Siemens 3T Tim Trio-skanner med en 32-kanalhuvudspole vid Wolfson Brain Imaging Center, University of Cambridge. En multi-eko-eko-plan bildsekvens användes med online-rekonstruktion (upprepningstid, 2.47 s, vändvinkel, 78 °; matrisstorlek 64 × 64; upplösning i planet, 3.75 mm; FOV, 240 mm; 32 skråskivor, alternerande skiva förvärv skiva tjocklek 3.75 mm med 10% gap, iPAT faktor, 3; bandbredd = 1,698 Hz / pixel; ekotid (TE) = 12, 28, 44 och 60 ms).
Multi-echo oberoende komponentanalys (ME-ICAv2.5 beta6; http://afni.nimh.nih.gov ) användes för analys och brusreducering av multi-echo fMRI-data i vilotillstånd. ME-ICA sönderdelar multi-echo fMRI-data till oberoende komponenter med FastICA. BOLD-signalens procentuella signalförändring är linjärt beroende av TE, ett kännetecken för T2*-sönderfallet. Detta TE-beroende mäts med hjälp av pseudo- F2 -statistiken, kappa, med komponenter som skalar starkt där TE har höga kappapoäng [Kundu et al., 2012 ]. Icke-BOLD-komponenter identifieras genom TE-oberoende mätt med pseudo- F2 -statistiken, rho. Komponenter kategoriseras således som BOLD eller icke-BOLD baserat på deras kappa- respektive rho-värdesviktningar [Kundu et al., 2012 ]. Icke-BOLD-komponenter avlägsnas genom projektion, vilket minskar bruset i data för rörelse, fysiologiska och skannerartefakter på ett robust sätt baserat på fysikaliska principer. Varje individs brusreducerade ekoplanära bilder koregistrerades till deras MPRAGE och normaliserades till Montreal Neurological Institute (MNI) mall. Spatial utjämning utfördes med en Gaussisk kärna (full bredd, halv maximal = 6 mm). Tidsförloppet för varje voxel bandpassfiltrerades temporalt (0.008 < f < 0.09 Hz). Varje individs anatomiska skanning segmenterades i GM, WM och CSF. Signifikanta huvudkomponenter i signalerna från WM och CSF togs bort.
Funktionell konnektivitetsanalys utfördes med hjälp av en ROI-driven metod (region of interest) med CONN-fMRI Functional Connectivity toolbox [Whitfield-Gabrieli och Nieto-Castanon, 2012 ] för SPM ( http://www.fil.ion.ucl.ac.uk/spm/software/spm8/ ).
Statistisk analys
Försökspersonernas egenskaper och frågeformulärspoäng jämfördes mellan grupperna med tvåsidiga t- test utan att anta lika varians. Alla statistiska analyser utfördes med R-version (3.2.0) [RC Team, 2014 ].
Strukturella
För gruppjämförelser infördes GM-volymer för CSB-patienter och HV i en generell linjär modell (GLM). Data korrigerades för deltagarnas totala intrakraniella volym med hjälp av proportionell skalning och en explicit mask i SPM. Gruppjämförelser justerades för både ålder och depressionspoäng som kovariater. Vi fokuserade på a priori hypoteserade regioner av intresse som identifierades i vår tidigare studie [Voon et al., 2014 ] och i metaanalyser av läkemedelsreaktivitetsstudier [Kühn och Gallinat, 2011 ], nämligen vänster och höger VS, vänster och höger amygdala, och dorsal ACC med hjälp av small volume corrected (SVC) family-wise error (FWE) korrigerad P < 0.01 (Bonferroni-korrigerad för multipla jämförelser). För dessa SVC-analyser använde vi en VS anatomisk ROI, tidigare beskriven [Murray et al., 2008 ] som ritades för hand med hjälp av MRIcro baserat på definitionen av VS av Martinez et al. [ 2003 ]. Amygdalas ROI erhölls från AAL-atlasen (Automated Anatomical Labelling). Den dorsala ACC ändrades manuellt med hjälp av MarsBaR ROI-verktygslådan [Brett et al., 2002 ] och baserades på cingulära cortex-ROI från AAL-atlasen. Den modifierades så att den främre kanten var spetsen på corpus callosums genus [Cox et al., 2014 ; Desikan et al., 2006 ] och den posteriora kanten var den bakre änden av corpus callosums genus [Desikan et al., 2006 ]. Ytterligare analyser som justerade för BDI-poäng utfördes.
Viloläge
För att jämföra konnektiviteten mellan CSB-patienter och HV beräknades ROI-till-voxel-helhjärnans konnektivitetskartor för den vänstra amygdala-fröregionen av intresse baserat på volymetriska gruppskillnadsfynd. Resulterande konnektivitetskartor matades in i fullständiga faktoriella GLM:er för att jämföra helhjärnans konnektivitet mellan grupper justerat för ålder med en efterföljande analys justerat för både ålder och depression. Helhjärnsklusterkorrigerat FWE P < 0.05 ansågs signifikant för gruppskillnader.
RESULTAT
Egenskaper
Tjugotre heterosexuella män med CSB (ålder 26.9; SD 6.22 år) och 69 åldersmatchade (ålder 25.6; SD 6.55 år) heterosexuella manliga HV deltog i studien (tabell 2 ), varav 19 CSB-patienter och 55 HV fyllde i beteendemässiga frågeformulär. CSB-patienter hade högre BDI ( P = 0.006) och UPPS-P ( P < 0.001) poäng jämfört med HV. Andra beteendemässiga poäng, inklusive mönster och svårighetsgrad av pornografi och internetanvändning, har rapporterats på annat håll [Mechelmans et al., 2014 ; Voon et al., 2014 ].
Tabell 2. Demografiska och beteendemässiga data för tvångsmässiga sexuella beteende och friska volontärer
|
Grupp |
Ålder |
BDI |
Upps-P |
|---|---|---|---|
Saknar 4-deltagare av 23.
Saknar 14-deltagare av 69.
|
|||
| CSB (N = 23) | 26.9 (6.22) | 14.82 (11.85)a | 152.21 (16.50)a |
| HV (N = 69) | 25.6 (6.55) | 6.03 (7.20)b | 124.87 (20.73)b |
| T-värde (P-värde) | 0.88 (P = 0.380) | 3.04 (P = 0.006) | 5.81 (P <0.001) |
Strukturella
ROI-analyserna av vänster och höger amygdala, vänster och höger VS och dorsal ACC visade att vänster amygdalas grå substansvolym var ökad i CSB jämfört med matchad HV (SVC FWE-korrigerad, P = 0.0096, Z = 3.37, xyz = −28, −4, −15) (Bonferroni-korrigerad för SVC FWE-korrigerad P < 0.01) (Fig. 1 ). Alla andra ROI-analyser var inte signifikanta. Justering för depression förändrade inte gruppskillnadsfynden.

Figur 1.

Voxelbaserad morfometri vid tvångsmässigt sexuellt beteende. Större volym i vänster amygdala visas vid tvångsmässigt sexuellt beteende i förhållande till friska frivilliga. Bilden är tröskelvärderad till P < 0.005 okorrigerad för illustration. [Färgfigur kan ses på wileyonlinelibrary.com ]
Viloläge
Baserat på de strukturella resultaten undersökte vi funktionell konnektivitet i vilotillstånd med ett frö i vänster amygdala. Vi fann minskad konnektivitet med bilateral DLPFC (Höger DLPFC: P = 0.012, Z = 4.11, xyz = 31 42 16; Vänster DLPFC: P = 0.003, Z = 3.96, xyz = −27 52 23) (Fig. 2 ). Justering för BDI förändrade inte signifikansen av fynden (Höger DLPFC: P = 0.001, Z = 4.54, xyz = 31 61 23; Vänster DLPFC: P = 0.003, Z = 4.26, xyz = −29 49 35).

Figur 2.

Funktionell konnektivitet i vilotillstånd hos vänster amygdala. Tvångsmässigt sexuellt beteende är associerat med minskad funktionell konnektivitet i vilotillstånd hos vänster amygdala (frö, vänster) med bilateral dorsolateral prefrontal cortex (mitten och höger), i förhållande till friska frivilliga. Bilden är tröskelvärderad till P < 0.005 okorrigerad för illustration. [Färgfigur kan ses på wileyonlinelibrary.com ]
DISKUSSION
Vi undersökte strukturella och funktionella neurala skillnader hos individer med CSB jämfört med matchad HV. CSB-patienter hade ökat vänster amygdala-volym och minskad funktionell anslutning under vila mellan vänstra amygdala och bilaterala DLPFC.
Amygdala är involverad i bearbetning av miljömässig saliens som styr beteende. Amygdalas kärnor länkar tidigare neutrala miljömässiga eller interna stimuli med associativa representationer av affektivt värde, vilket förökar ledtrådsinducerad motivationsmässig saliens [Everitt et al., 2003 ], såväl som bearbetning av emotionell kontroll [Cardinal et al., 2002 ; Gottfried et al., 2003 ]. Fyndet av ökad amygdalavolym står i motsats till flera studier om alkoholberoende [Makris et al., 2008 ; Wrase et al., 2008 ], eftersom studier över denna typ av missbruk rapporterar minskade amygdalavolymer, där volymetriska mått har utvärderats. En potentiell förklaring till denna skillnad är att långvarigt substansbruk resulterar i långvariga neuroplastiska förändringar och toxicitet [Kovacic, 2005 ; Reissner och Kalivas, 2010 ] som kan bidra till att drogsökande beteende fortsätter [Gass och Olive, 2008 ]. Sådan neurotoxicitet kan säkerligen bidra till den utbredda atrofi som observerats vid substansberoende [Bartzokis et al., 2000 ; Carlen et al., 1978 ; Mechtcheriakov et al., 2007 ]. Sådan drogrelaterad neurotoxicitet är sannolikt en mycket relevant fråga vid användning av stressrelaterade tillstånd men mindre av ett problem vid beteendemässiga beroenden. I en nyligen genomförd CSB-studie med fMRI var exponering för sexuellt explicita signaler hos CSB jämfört med icke-CSB-personer associerad med aktivering av amygdala [Voon et al., 2014 ]. Huruvida skillnaden i amygdalavolym är ett redan existerande drag som predisponerar individer för CSB eller relaterad till överdriven exponering återstår att fastställa.
Det är välkänt att DLPFC:s funktion är associerad med breda aspekter av kognitiv kontroll [MacDonald et al., 2000 ] och arbetsminne [Petrides, 2000 ]. Vårt fynd av minskad funktionell konnektivitet mellan amygdala och DLPFC överensstämmer med befintlig litteratur om konnektivitet i dessa regioner. Denna funktionella konnektivitet är viktig för emotionsreglering, vilket tidigare har rapporterats i det att minskad konnektivitet mellan amygdala och DLPFC hos individer med internetspelstörning är associerad med högre nivåer av impulsivitet [Ko et al., 2015 ]. En annan studie som mätte förmågan att modulera negativa emotionella reaktioner genom användning av kognitiva strategier visade att aktivitet i specifika områden av frontala cortex, inklusive DLPFC, samvarierade med amygdalaaktivitet, och att funktionell konnektivitet mellan dessa regioner var beroende av att tillämpa kognitiva strategier för att reglera negativa känslor [Banks et al., 2007 ]. Amygdala- och DLPFC-konnektivitet har på liknande sätt associerats med unipolär depression [Siegle et al., 2007 ]. CSB har associerats med depressiva och ångestsymtom och stress kan utlösa sådana aktiviteter; våra resultat var dock inte relaterade till depressionspoäng. DLPFC var också involverad i en studie av manlig HV där större pornografianvändning var associerad med lägre funktionell koppling mellan DLPFC och striatum vid visning av explicita bilder [Kühn och Gallinat, 2014 ].
Vi är försiktiga att dessa resultat är preliminära med tanke på den lilla provstorleken hos CSB-patienter, men vi jämför jämförbart denna grupp med en stor samplingsstorlek av matchad HV. En begränsning av studien är homogeniteten hos befolkningen. Eftersom vi inte inkluderade ämnen med andra comorbida psykiatriska störningar som kan spela en mekanistisk roll, bör dessa resultat försiktigt extrapoleras till CSB-patienter med andra comorbiditeter. Vidare kan de observerade strukturella och funktionella abnormiteterna hos CSB-ämnena relateras till tidigare existerande egenskaper eller kan vara ett resultat av CSB: s effekter, och som sådan kan denna studie inte orsaka kausala slutsatser om effekterna av CSB. Framtida studier ska syfta till att bedöma longitudinella åtgärder för att bestämma skillnader mellan tillstånd och egenskaper och potentiella före-morbid neurala abnormiteter i större provstorlekar och blandade könen.
Våra nuvarande fynd belyser förhöjda volymer i en region som är involverad i motivationsframträdande och lägre vilotillståndskonnektivitet i prefrontala top-down regulatoriska kontrollnätverk. Störningar i sådana nätverk kan förklara de avvikande beteendemönstren gentemot miljömässigt framträdande belöning eller ökad reaktivitet på framträdande incitamentsignaler. Även om våra volymetriska fynd står i kontrast till de i användning av ämnesomsättning, kan dessa fynd återspegla skillnader som en funktion av de neurooxiska effekterna av kronisk drogexponering. Nya bevis tyder på potentiella överlappningar med en beroendeprocess, vilket särskilt stöder teorier om incitamentsmotivation. Vi har visat att aktiviteten i detta framträdande nätverk sedan ökar efter exponering för mycket framträdande eller föredragna sexuellt explicita signaler [Brand et al., 2016 ; Seok och Sohn, 2015 ; Voon et al., 2014 ] tillsammans med ökad uppmärksamhetsbias [Mechelmans et al., 2014 ] och begär specifikt för den sexuella signalen men inte generaliserat sexuellt begär [Brand et al., 2016 ; Voon et al., 2014 ]. Ökad uppmärksamhet på sexuellt explicita signaler är vidare associerad med preferens för sexuellt betingade signaler, vilket bekräftar sambandet mellan sexuell signalbetingning och uppmärksamhetsbias [Banca et al., 2016 ]. Dessa fynd av ökad aktivitet relaterad till sexuellt betingade signaler skiljer sig från resultatet (eller den obetingade stimulusen) där ökad tillvänjning, möjligen i överensstämmelse med toleransbegreppet, ökar preferensen för nya sexuella stimuli [Banca et al., 2016 ]. Tillsammans bidrar dessa fynd till att belysa den underliggande neurobiologin hos CSB, vilket leder till en större förståelse av sjukdomen och identifiering av möjliga terapeutiska markörer.
TACK
Vi vill tacka WBIC-personal för deras kompetens och hjälp med att samla bildbildningsdata och våra deltagare för deras tid och engagemang. Vi vill också tacka Thaddeus Birchard och Paula Hall för hänvisning av patienter till studien. Institutet för beteende och klinisk neurovetenskap (BCNI) stöds av Wellcome Trust och Medical Research Council.
REFERENSER
- Ashburner J (2007): En snabb diffeomorf bildregistreringsalgoritm. Neuroimage 38: 95-113.
- Banca P, Morris LS, Mitchell S, Harrison NA, Potenza MN, Voon V (2016): Nyhet, konditionering och uppmärksam bias mot sexuella belöningar. J Psykiatr Res 72: 91-101.
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 2
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 307
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 75
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times citerade: 18323
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 1
- Banker SJ, Eddy KT, Angstadt M, Nathan PJ, Phan KL (2007): Amygdala-frontalanslutning under känslighetsreglering. Soc Cogn påverkar Neurosci 2: 303-312.
- CrossRef |
- Web of Science® Times citerade: 1
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 1087
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times citerade: 342 |
- ADS
- Bartzokis G, Beckson M, Lu PH, Edwards N, Rapoport R, Wiseman E, Bridge P (2000): Åldersrelaterad hjärnvolymminskning i amfetamin- och kokainmissbrukare och normala kontroller: Konsekvenser för missbruksforskning. Psykiatri Res Neuroimaging 98: 93-102.
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 16 |
- ADS
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 7
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 1782
- Wiley Online Library |
- PubMed |
- Web of Science® Times citerade: 245
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times citerade: 217
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times citerade: 597 |
- ADS
- CrossRef |
- PubMed |
- Web of Science®
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 19
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 27
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 21
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 172
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 8
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 5
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times citerade: 30
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times citerade: 1
- Wiley Online Library |
- PubMed |
- Web of Science® Times citerade: 76
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 23
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 63
- Beck AT, Ward C, Mendelson M (1961): Beck Depression inventory (BDI). Arch Gen Psychiatry 4: 561-571.
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times citerade: 1895 |
- ADS
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times citerade: 134
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times citerade: 313
- Märke M, Snagowski J, Laier C, Maderwald S (2016): entralstriatumaktivitet när man tittar på föredragna pornografiska bilder är korrelerad med symtom på internetpornografiberoende. Neuroimage 129: 224-232.
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 7 |
- ADS
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 70
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 28
- CrossRef |
- CAS |
- Web of Science® Times citerade: 196
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times citerade: 255
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 3
- Wiley Online Library |
- PubMed |
- Web of Science® Times citerade: 20
- Brett M, Anton JL, Valabregue R, Poline JB (2002): Ränteanalys med hjälp av MarsBar verktygslåda för SPM 99. Neuroimage 16: S497.
- Wiley Online Library |
- PubMed |
- Web of Science® Times citerade: 43
- CrossRef |
- PubMed |
- CAS |
- Web of Science® Times citerade: 63
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 1
- PubMed |
- Web of Science® Times citerade: 7675
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 383
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 4
- Wiley Online Library |
- PubMed |
- Web of Science® Times citerade: 38
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 110
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 25
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 3
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 25
- CrossRef |
- Web of Science® Times citerade: 1108
- CrossRef |
- PubMed
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 92
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 3
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 72 |
- ADS
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 31 |
- ADS
- CrossRef |
- PubMed |
- Web of Science® Times citerade: 66
- Cai C, Yuan K, Yin J, Feng D, Bi Y, Li Y, Yu D, Jin C, Qin W, Tian J (2015): Striatummorfometri är förknippad med kognitiva kontrollunderskott och symptomsvårighetsgrad i internetstörning. Brain Imaging Behav 10: 12.
- Kardinal RN, Parkinson JA, Hall J, Everitt BJ (2002): Emotion och motivation: Amygdala roll, ventralstriatum och prefrontal cortex. Neurosci Biobehav Rev 26: 321-352.
- Carlen PL, Wortzman G, Holgate RC, Wilkinson DA, Rankin JC (1978): Reversibel cerebral atrofi hos nyligen avlägsna kroniska alkoholister uppmätta med beräkningar av datortomografi. Vetenskap 200: 1076-1078.
- Carnes P, Delmonico DL, Griffin E (2007): I nätets skuggor: Krossar fri från tvångsmässigt sexuellt beteende, 2nd ed. Center City, MN: Hazelden Publishing.
- Connolly CG, Bell RP, Foxe JJ, Garavan H (2013): Dissocierad grå materia förändras med långvarig beroende och förlängd avhållsamhet hos kokainanvändare. PLOS One 8: e59645.
- Cox SR, Ferguson KJ, Royle NA, Shenkin SD, MacPherson SE, MacLullich AMJ, Deary IJ, Wardlaw JM (2014): En systematisk översyn av hjärnans frontal lobe-parcelleringsteknik vid magnetisk resonansbildning. Brain Struct Funct 219: 1-22.
- Desikan RS, Ségonne F, Fischl B, Quinn BT, Dickerson BC, Blacker D, Buckner RL, Dale AM, Maguire RP, Hyman BT (2006): Ett automatiserat märkningssystem för att dela upp den mänskliga hjärnbarken på MR-skanningar i gyralbaserade regioner av intresse. Neuroimage 31: 968-980.
- Everitt BJ, kardinal RN, Parkinson JA, Robbins TW (2003): Appetitivt beteende: Påverkan av amygdalaberoende mekanismer för emotionellt lärande. Ann NY Acad Sci 985: 233-250.
- Gass JT, Olive MF (2008): Glutamatergiska substrat av narkotikamissbruk och alkoholism. Biochem Pharmacol 75: 218-265.
- Gottfried JA, O'Doherty J, Dolan RJ (2003): Kodning av prediktivt belöningsvärde i mänsklig amygdala och orbitofrontal cortex. Vetenskap 301: 1104–1107.
- Grant JE, Odlaug BL, Chamberlain SR (2015): Minskad kortikal tjocklek vid spelproblem: En morfometrisk MR-studie. Eur Arch Psykiatri Clin Neurosci 265: 655-661.
- Van Holst RJ, de Ruiter MB, van den Brink W, Veltman DJ, Goudriaan AE (2012): En voxelbaserad morfometristudie som jämför problemgamlare, alkoholmissbrukare och hälsosamma kontroller. Drogalkohol beror 124: 142-148.
- Hong SB, Kim JW, Choi EJ, Kim HH, Suh JE, Kim CD, Klauser P, Whittle S, Yücel M, Pantelis C, Yi SH (2013): Minskad orbitofrontal kortikal tjocklek hos manliga ungdomar med internetberoende. Behav Brain Funct 9: 11.
- Joutsa J, Saunavaara J, Parkkola R, Niemelä S, Kaasinen V (2011): Omfattande abnormitet i hjärnans vita substansintegritet vid patologiskt spelande. Psychiatry Res - Neuroimaging 194: 340–346.
- Kafka MP (2010): Hypersexuell störning: En föreslagen diagnos för DSM-V. Arch Sex Behav 39: 377-400.
- Ko CH, Hsieh TJ, Wang PW, Lin WC, Yen CF, Chen CS, Yen JY (2015): Förändrad grå materie täthet och störd funktionell anslutning av amygdala hos vuxna med internet spel störning. Prog Neuropsychopharmacol Biolpsykiatri 57: 185-192.
- Koehler S, Hasselmann E, Wüstenberg T, Heinz A, Romanczuk-Seiferth N (2013): Högre volym ventralstriatum och höger prefrontal cortex vid patologiskt spelande. Brain Struct Funct 220: 469-477.
- Kovacic P (2005): Ensam mekanism för missbruk och toxicitet hos missbrukade läkemedel med applicering på dopamin och glutamatmediatorer: Elektronöverföring och reaktiva syrearter. Med hypoteser 65: 90-96.
- Kraus SW, Voon V, Potenza MN (2016): Neurobiologi av tvångsmässigt sexuellt beteende: Emerging science. Neuropsykofarmakologi 41: 385-386.
- Kühn S, Gallinat J (2011): Gemensam biologi av begär längs lagliga och olagliga droger - en kvantitativ meta-analys av hjärnans respons hos cue-reaktivitet. Eur J Neurosci 33: 1318-1326.
- Kühn S, Gallinat J (2014): Hjärnstruktur och funktionell anslutning i samband med pornografiförbrukning: Hjärnan på porr. JAMA Psykiatri 71: 827-834.
- Kundu P, Inati SJ, Evans JW, Luh WM, Bandettini PA (2012): Differentierande BOLD och icke-BOLD-signaler i fMRI-tidsserier med hjälp av multi-echo EPI. Neuroimage 60: 1759-1770.
- Lin X, Dong G, Wang Q, Du X (2014): Onormal grå materia och vit materiavolym i "Internet-missbrukare." Addict Behav 40C: 137-143.
- MacDonald AW, Cohen JD, Stenger VA, Carter CS (2000): Dissociating rollen av den dorsolaterala prefrontala och främre cingulära cortexen i kognitiv kontroll. Vetenskap 288: 1835-1838.
- Makris N, Oscar-Berman M, Jaffin SK, Hodge SM, Kennedy DN, Caviness VS, Marinkovic K, Breiter HC, gasläkare, Harris GJ (2008): Minskad volym av hjärnbelöningssystemet vid alkoholism. Biolpsykiatri 64: 192-202.
- Martinez D, Slifstein M, Broft A, Mawlawi O, Chatterjee R, Hwang DR, Huang Y, Cooper T, Kegeles L, Zarahn E, Abi-Dargham A, Haber SN, Laruelle M (2003): Bildbehandling av human mesolimbisk dopaminöverföring med positronemissionstomografi. Del II: Amfetamininducerad dopaminfrisättning i striatumens funktionella indelningar. J Cereb Blood Flow Metab 23: 285-300.
- Mcgahuey CA, Gelenberg AJ, Cindi A, Moreno FA, Delgado PL, Mcknight KM, Manber R (2011): Journal of sex & marital the arizona sexual experience scale (asex): pålitlighet och giltighet. J Sex Marital Ther 26: 37–41.
- Mechelmans DJ, Irvine M, Banca P, Porter L, Mitchell S, Mole TB, Lapa TR, Harrison NA, Potenza MN, Voon V (2014): Förbättrad medvetenhet mot sexuellt uttryckliga signaler hos individer med och utan tvångssyndrom. PLOS One 9: e105476.
- Mechtcheriakov S, Brenneis C, Egger K, Koppelstaetter F, Schocke M, Marksteiner J (2007): Ett utbrett distinkt mönster av cerebral atrofi hos patienter med alkoholberoende som avslöjas av voxelbaserad morfometri. J Neurol Neurosurg Psykiatri 78: 610-614.
- Miner MH, Raymond N, Mueller B. a, Lloyd M, Lim KO (2009): Preliminär undersökning av de impulsiva och neuroanatomiska egenskaperna hos tvångsmässigt sexuellt beteende. Psychiatry Res - Neuroimaging 174: 146–151.
- Murray GK, Corlett PR, Clark L, Pessiglione M, Blackwell AD, Honey G, Jones PB, Bullmore ET, Robbins TW, Fletcher PC (2008): Substantia nigra / ventral tegmental belöning förutsägelse fel störning i psykos. Molpsykiatri 13: 267-276.
- Petrides M (2000): Den centrala dorsolaterala prefrontala cortexens roll i arbetsminnet. Exp Brain Res 133: 44-54.
- Prause N, Steele VR, Staley C, Sabatinelli D, Proudfit GH (2015): Modulering av sena positiva potentialer genom sexuella bilder hos problemanvändare och kontroller inkonsekvent med "pornoberoende". Biol Psychol 109: 192-199.
- Rando K, Tuit K, Hannestad J, Guarnaccia J, Sinha R (2013): Sexskillnader i minskad limbisk och kortikal grå substansvolym i kokainberoende: En voxelbaserad morfometrisk studie. Addict Biol 18: 147-160.
- RC Team (2014): R: Ett språk och miljö för statistisk dator. Wien, Österrike: R Stiftelsen för statistisk dator. ISBN 3-900051-07-0.
- Reid RC, Carpenter BN, Hook JN, Garos S, Manning JC, Gilliland R, Cooper EB, McKittrick H, Davtian M, Fong T (2012): Rapport av fynd i en DSM-5 fältförsök för hypersexuell störning. J Sex Med 9: 2868-2877.
- Reissner KJ, Kalivas PW (2010): Användning av glutamathemostasis som ett mål för behandling av beroendeframkallande sjukdomar. Behav Pharmacol 21: 514.
- Seok JW, Sohn JH (2015): Neural substrat av sexuell lust hos individer med problematisk hypersexuellt beteende. Front Behav Neurosci 9: 1-11.
- Sheehan DV, Lecrubier Y, Sheehan KH, Amorim P, Janavs J, Weiller E, Hergueta T, Baker R, Dunbar GC (1998): Den miniinternationella neuropsykiatriska intervjun (mini): utveckling och validering av en strukturerad diagnostisk psykiatrisk intervju för DSM-IV och ICD-10. J Clin Psychiatry 59: 22-33.
- Siegle GJ, Thompson W, Carter CS, Steinhauer SR, Thase ME (2007): Ökad amygdala och minskad dorsolateral prefrontal BOLD-respons vid unipolär depression: Relaterade och oberoende egenskaper. Biolpsykiatri 61: 198-209.
- Sun Y, Sun J, Zhou Y, Ding W, Chen X, Zhuang Z, Xu J, Du Y (2014): Bedömning av förändringar i in vivo mikrostrukturer i grå materia med DKI i internetmissbruk. Behav Brain Funct 10: 37.
- Taki Y, Kinomura S, Sato K, Goto R, Inoue K, Okada K, Ono S, Kawashima R, Fukuda H (2006): Både den globala gråmängden och den regionala gråmängden är negativt korrelerade med alkoholintaget för livstid i alkohol -dependenta japanska män: En volymetrisk analys och en voxelbaserad morfometri. Alkoholklin Exp Exp 30: 1045-1050.
- Tanabe J, Tregellas JR, Dalwani M, Thompson L, Owens E, Crowley T, Banich M (2009): Medial orbitofrontal cortexgrå materia reduceras hos avstående substansberoende individer. Biolpsykiatri 65: 160-164.
- Voon V, Mole TB, Banca P, Porter L, Morris L, Mitchell S, Lapa TR, Karr J, Harrison NA, Potenza MN, Irvine M (2014): Neurala korrelater av sexuell cuereaktivitet hos individer med och utan tvångssyndrom . PLOS One 9: e102419.
- Wang H, Jin C, Yuan K, Shakir TM, Mao C, Niu X, Niu C, Guo L, Zhang M (2015): Förändringen av gråmassa och kognitiv kontroll hos ungdomar med internetstörning. Front Behav Neurosci 9: 1-7.
- Weng CB, Qian RB, Fu XM, Lin B, Han XP, Niu CS, Wang YH (2013): Gråmaterial och avvikelser i vitämnen i onlinespelavvikelse. Eur J Radiol 82: 1308-1312.
- Whiteside SP, Lynam DR (2001): Femfaktormodellen och impulsiviteten: Använda en strukturell modell av personlighet för att förstå impulsivitet. Pers Individ Diff 30: 669-689.
- Whitfield-Gabrieli S, Nieto-Castanon A (2012): En funktionell anslutningsverktygslåda för korrelerade och antikorrelerade hjärnanät. Brain Connect 2: 125-141.
- Wrase J, Makris N, Braus DF, Mann K, Smolka MN, Kennedy DN, Caviness VS, Hodge SM, Tang L, Albaugh M, Ziegler D. a, Davis OC, Kissling C, Schumann G, Breiter HC, Heinz A 2008): Amygdala volym associerad med alkoholmissbruk återfall och begär. Am J Psykiatri 165: 1179-1184.
- Xiao P, Dai Z, Zhong J, Zhu Y, Shi H, Pan P (2015): Regionala gråämnesunderskott i alkoholberoende: En metaanalys av voxelbaserade morfometri-studier. Drogalkohol beror 153: 22-28.
- Yuan K, Qin W, Wang G, Zeng F, Zhao L, Yang X, Liu P, Liu J, Sun J, von Deneen KM, Gong Q, Liu Y, Tian J (2011): Mikrostrukturavvikelser hos ungdomar med internetberoende oordning. PLOS One 6: e20708.
- Yuan K, Cheng P, Dong T, Bi Y, Xing L, Yu D, Zhao L, Dong M, von Deneen KM, Liu Y, Qin W, Tian J (2013): abnormaliteter i kortisk tjocklek i sen ungdom med onlinespel . PLOS One 8: e53055.
- Zhou Y, Lin FC, Du YS, Qin LD, Zhao ZM, Xu JR, Lei H (2011): Avvikelser av gråämne i Internetberoende: En voxelbaserad morfometriundersökning. Eur J Radiol 79: 92-95.