Neurosci Biobehav Rev. 2011 jan;35(3):939-55. doi: 10.1016/j.neubiorev.2010.10.014. Epub 2 nov 2010.
- 1Bernard B. Brodie Institutionen för neurovetenskap, University of Cagliari, Cittadella Universitaria, 09042 Monserrato, CA, Italien. [e-postskyddad]
ABSTRAKT
Oxytocin är en potent inducer av penile erektion när den injiceras i centrala nervsystemet. Hos råttor är det mest känsliga hjärnområdet för oxytocins pro-erektil effekt den hypogalamus paraventrikulära kärnan. Denna kärna och omgivande områden innehåller cellkropparna hos alla oxytocinerga neuroner som skjuter ut till extrahypotalamiska hjärnområden och ryggmärgen. Denna översyn visar att oxytocin inducerar penile erektion även vid injektion på vissa av dessa områden (t.ex. ventral tegmental area, ventrikulär subikulum i hippocampus, posteromedial kortikala kärnan i amygdala och thoracolänus ryggmärg). Mikroinjektionsstudier kombinerat med intra-cerebral mikrodialys och dubbel immunofluorescensstudier antyder att oxytocin i dessa områden aktiverar mesolimbiska dopaminerga neuroner direkt eller indirekt (huvudsakligen genom glutaminsyra). Dopamin som frigörs i kärnan accumbens aktiverar i sin tur neurala vägar som leder till aktiveringen av dopaminerga neuroner i incerto-hypotalam i den paraventrikulära kärnan. Detta aktiverar inte bara oxytocinerga neuroner som projicerar på ryggmärgen och förmedlar penis erektion, men även de som projicerar till ovanstående extrahypothalamiska områden, som direkt eller indirekt modulerar (genom glutaminsyra) aktiviteten hos mesolimbiska dopaminerga neuroner som styr motivation och belöning. Tillsammans kan dessa neurala vägar utgöra en komplex hypotetisk krets, som spelar en roll inte bara i den sexuella aktivitetsfasen (erektil funktion och kopiering) utan också i de motivativa och givande aspekterna av den förväntade fasen av sexuellt beteende.
1.Introduction
Peniserektion är en manlig sexuell reaktion som spelar en nyckelroll i reproduktionen hos däggdjur, inklusive människan, och som även kan observeras i sammanhang som skiljer sig från de som strikt relaterade till reproduktion. Beroende på i vilket sammanhang peniserektion sker, deltar olika centrala och perifera neurala och/eller humorala mekanismer i dess reglering (se Meisel och Sachs, 1994; Argiolas och Melis, 1995, 2004, 2005; Sachs, 2000, 2007; McKenna, 2000; Giuliano och Rampin, 2000, 2004; Andersson, 2001; Melis och Argiolas, 1995a, 2003; Hull et al., 2002). Bland centrala neurotransmittorer och neuropeptider som kontrollerar peniserektion är de mest kända dopamin, serotonin, exciterande aminosyror, kväveoxid, adrenokortikotropin, oxytocin och opioidpeptider . De kan underlätta eller hämma peniserektion genom att verka i flera hjärnområden, dvs. det mediala preoptiska området, hypotalamus paraventrikulära kärna, det ventrala tegmentala området, hippocampus, amygdala, stria terminalis bäddkärna, nucleus accumbens, medulla oblongata och ryggmärgen (tabell 1) (se Meisel och Sachs, 1994; Witt och Insel, 1994; Stancampiano et al., 1994; Argiolas och Melis, 1995, 2005; Argiolas, 1999; Bancila et al., 2002; Giuliano och Rampin, 2000, McKenna, 2000; Andersson, 2001; Hull et al., 2002; Coolen et al., 2004).
Oxytocin, den neurohypophysiska peptiden, som är känd för sin hormonella roll vid laktation och förlossning, förekommer hos kvinnor och män, inte bara i neuroner med cellkroppar belägna i de paraventrikulära och supraoptiska kärnorna i hypotalamus som utstrålar neurohypofysen, men också i neuroner som projicerar från paraventrikulära kärnor och omgivande strukturer till extrahypotalamiska hjärnområden (dvs. septum, ventral tegmental, hippocampus, amygdala, medulla oblongata och ryggrad). Dessa neuroner anses vara involverade i många centrala funktioner, såsom minne, lärande, associerade och socio-sexuella beteenden, inklusive penile erektion och copulatoriskt beteende (se Buijs, 1978, Sofroniew, 1983, Argiolas och Gessa, 1991, Pedersen et al , 1992; Carter, 1992; Wagner och Clemens, 1993; Ivell och Russel, 1995; Carter et al., 1997; Tang et al., 1998; Veronneau-Longueville et al., 1999). Oxytocin underlättar faktiskt erektilfunktion och manligt sexuellt beteende hos möss, råttor, kaniner och apor (se Argiolas och Gessa, 1991; Carter, 1992; Pedersen et al., 1992; Argiolas and Melis, 1995, 2004; Argiolas, 1999). Detta kan också inträffa hos människor, eftersom plasmaoxytocin ökas genom sexuella stimuli, särskilt vid utlösning (Carmichael et al., 1987, Murphy et al., 1987) och genom manipulation av bröst och könsorganen, som vanligen förekommer under sexuella samlag (Tindall, 1974).
En facilitativ effekt av oxytocin på manligt sexuellt beteende demonstrerades först genom intravenös oxytocins förmåga att minska latensen till den första utlösningen och fördröja sexuell utmattning hos manliga kaniner i paritet med mottagliga honor (Melin och Kihlstrom, 1963). Emellertid blev sexytiska effekterna av oxytocin definitivt erkända endast under åttiotalet. Oxytocin som ges centralt i nanogram, fann man att man kunde framkalla penis erektion (Argiolas et al., 1985, 1986) och förbättra copulatoriskt beteende (Arletti et al., 1985) hos hanrotter och öka lordos hos honrotter (Arletti och Bertolini, 1985; Caldwell et al., 1986), uppenbarligen genom att verka på oxytocinerga receptorer av uterintyp (se Argiolas och Melis, 1995, 2004; Argiolas, 1999; Melis och Argiolas, 2003; och referenser däri). Oxytocin förbättrar sexuellt beteende, inte bara hos sexuella potatiska råttor (Arletti et al., 1985) utan även hos äldre manrotter (Arletti et al., 1990) och i dominanta, men inte underordnade, manliga ekorre (Winslow and Insel , 1991).
Den pro-erektila effekten av oxytocin är testosteronberoende, eftersom den upphävs genom hypofysektomi och kastrering, och återställs genom tillskott med testosteron eller dess metaboliter, östradiol och 5-dihydrotestosteron givet tillsammans (Melis et al., 1994a). Det känsligaste hjärnområdet för induktion av penilektion med oxytocin är den paraventrikulära kärnan i hypotalamus (Melis et al., 1986), från vilken alla extrahypotalamiska oxytocinerga utsprång härrör (se ovan). Här fann man att oxytocin kunde inducera penilektion (och gäspningar) när det injicerades i doser så låga som 3 pmol (se avsnitt 2.1 nedan). Oxytocin inducerade penilektion även när det injicerades bilateralt i CA1-fältet i hippocampus, men inte i dorsala subikulumet (se avsnitt 2.3 nedan), laterala septum, nucleus caudatus, det mediala preoptiska området, den ventromediala nucleus i hypotalamus och den supraoptiska nucleus (Melis et al., 1986). Beträffande mekanismen genom vilken oxytocin verkar i den paraventrikulära nucleus för att inducera denna sexuella respons, tyder ett flertal studier på att oxytocin aktiverar sina egna neuroner. I linje med denna hypotes ökar sexuell interaktion FOS, genprodukten av den omedelbara tidiga genen c-fos i paraventrikulära oxytocinerga neuroner som projicerar till ryggmärgen, vilka är involverade i kontrollen av penisektion (se Witt och Insel, 1994 och referenser däri), och sexuell impotens (t.ex. oförmågan hos en vuxen hanråtta att kopulera med en ovariektomiserad östrogen-progesteronprimerad receptiv hona) har hos hanråtta associerats med låga nivåer av oxytocin-mRNA i hypotalamus paraventrikulära kärna (Arletti et al., 1997).
Huruvida oxytocin påverkar den förväntande fasen eller den konsumtiva fasen av sexuellt beteende är oklart för närvarande . Eftersom oxytocin inducerar erektion och den huvudsakliga effekten av oxytocin på kopulatoriskt beteende är en minskning av postejakulatoriskt intervall hos hanråttor (Arletti et al., 1985), är det rimligt att anta att peptiden förbättrar sexuell prestation. Men eftersom oxytocin också ökar sociosexuell interaktion (se Pedersen et al., 1992; Carter et al., 1997; Ivell och Russel, 1995), och oxytocinreceptorantagonister förhindrar kontaktlösa erektioner (Melis et al., 1999a), vilka betraktas som ett index för sexuell upphetsning (se Sachs, 1997, 2000, 2007; Melis et al., 1998, 1999b och referenser däri), kan en möjlig roll för oxytocin i sexuell upphetsning och sexuell motivation inte uteslutas.
Denna översikt sammanfattar publicerade och opublicerade resultat från nyligen genomförda studier, som visar att oxytocin inducerar erektion inte bara när det injiceras i hypotalamus paraventrikulära kärna, utan även i andra extrahypotalamiska hjärnområden, såsom det ventrala tegmentala området (Melis et al., 2007, 2009a; Succu et al., 2008), hippocampus ventrala subikulum och amygdalas posteriora kärna (Melis et al., 2009b, 2010), vilka är viktiga beståndsdelar i det limbiska systemet och tros spela en nyckelroll i motivations- och belöningsprocesser. Dessa studier visar att oxytocin deltar i neurala kretsar, vilka inkluderar andra neurotransmittorer, såsom dopamin och glutaminsyra, och andra hjärnområden än den paraventrikulära kärnan, t.ex. det ventrala tegmentala området, nucleus accumbens, hippocampus och områden som ännu inte identifierats. Dessa kretsar medierar sannolikt en interaktion mellan det mesolimbiska och det incerto-hypotalamiska dopaminerga systemet, och spelar en roll inte bara i den fullbordande fasen av manligt sexuellt beteende (t.ex. penis erektion och kopulation), utan också i sexuell motivation och sexuell upphetsning, och tillhandahåller därmed ett neuralt substrat för att förklara de motiverande och givande egenskaperna hos sexuell aktivitet.
2. Oxytocin påverkar penile erektion genom att verka i olika hjärnområden
2.1. Den hypotalamus paraventrikulära kärnan
Som påpekats ovan identifierades snart den paraventrikulära kärnan i hypotalamus som hjärnområdet mest känsligt för oxytocins pro-erektile effekt. När det injicerades ensidigt i denna kärna, sågs oxytocin aktivt vid doser så låga som 3 ng (3 pmol) (Melis et al., 1986). Struktur-aktivitetsrelationsstudier visade att oxytocininducerad penil erektion medierades av uterinetypoxytocinreceptorer, kopplade till en Ca2 + -strömning i cellkropparna hos oxytocinerga neuroner som skjuter ut till extrahypotalamiska hjärnområden och aktiveringen av kväveoxid-syntas. Kväveoxid i sin tur genom att fungera som en intracellulär budbärare med en ännu okänd mekanism (som inte involverar guanylatcyklas) leder till aktiveringen av oxytocinerga neuroner som skjuter ut till ryggmärgen och extrahypothalamiska hjärnområden, vilket inducerar penile erektion (Fig. 1) (se nedan och Argiolas och Melis, 1995, 2004, 2005 och referenser däri). Oxytocins förmåga att aktivera sina egna neuroner
Fig. 1. (MISSING) Schematisk representation av oxytocinerga neuroner, som härrör från hypothalamusens paraventrikulära kärna och projekterar till extrahypotalamiska hjärnområden, såsom ryggmärgen, VTA, hippocampus, amygdala etc. Aktivering av dessa neuroner med dopamin, excitatoriska aminosyror, oxytocin i sig, hexarelinanalogpeptider och VGF-härledda peptider leder till penile erektion som kan reduceras och / eller avskaffas genom stimulering av GABAergic, opioid- och cannabinoid CB1-receptorer. Aktiveringen av oxytocinerga neuroner är sekundär till aktiveringen av kväveoxid-syntas närvarande i dessa neuroner. Faktum är att endogen kväveoxid som bildas genom stimulering av dopamin, excitatoriska aminosyror eller oxytocinreceptorer eller exogen kväveoxid, som den härleddes från kväveoxiddonorer som ges direkt i den paraventrikulära kärnan, aktiverar oxytocinerga neuroner med en ännu icke identifierad mekanism, som uppenbarligen inte är relaterad till stimulering av guanylatcyklas. Detta orsakar i sin tur frisättningen av oxytocin i ryggmärgen och i extrahypotalamiska hjärnområden. Några detaljer om mekanismerna för att oxytocin inducerar penile erektion när de frisätts i dessa områden, t.ex. VTA, ventral subikulum och amygdala beskrivs i respektive hjärnområdesavsnitt. Här verkar oxytocin på sina egna receptorer och ökar NO-produktion, vilket leder till penile erektion som finns i PVN. I motsats till PVN aktiverar emellertid i caudal VTA NO guanylatcyklas. Detta medför en ökning av cGMP-koncentrationen som leder till aktiveringen av mesolimbiska dopaminerga neuroner och penile erektion. I VS NO aktiveras glutamatergiska neuroner som projicerar till extrahippocampala områden, inklusive VTA. Glutaminsyra i VTA aktiverar i sin tur mesolimbiska dopaminerga neuroner som hittades med oxytocin. Mekanismer som liknar de som beskrivs ovan kommer sannolikt att fungera även när penis erektion inträffar i fysiologiska sammanhang, nämligen som när manrottor placeras i närvaro av en otillgänglig mottaglig honkvinna (t.ex. icke-kontakt-erektioner) eller under sampolymerisering.
i den paraventrikulära kärnan stöddes av studier som visade att: (1) oxytocinreceptorer finns i denna hypotalamiska kärna (Freund-Mercier et al., 1987; Freund-Mercier och Stoeckel, 1995); (2) oxytocin underlättar sin egen frisättning in vitro och in vivo (Freund-Mercier och Richard, 1981, 1984; Moos et al., 1984); och (3) oxytocin exciterar sina egna neuroner genom att verka i den paraventrikulära kärnan (Yamashita et al., 1987). Dessutom har oxytocinerga synapser som påverkar cellkropparna hos magnocellulära oxytocinerga neuroner också identifierats i den paraventrikulära och supraoptiska kärnan i hypotalamus (Theodosis, 1985). Slutligen upphäver destruktion av centrala oxytocinerga neuroner genom elektrolytiska eller kemiska excitotoxiska lesioner i den paraventrikulära kärnan, vilket fullständigt utarmar oxytocininnehållet i centrala nervsystemet och ryggmärgen, inte bara den pro-erektila effekten av oxytocin, utan försämrar även läkemedelsinducerad peniserektion och kontaktlösa erektioner (se nedan och Argiolas et al., 1987a,b; Liu et al., 1997 och referenser däri). Resultat som liknar dem som observerats med lesioner i den paraventrikulära kärnan observeras med potenta och selektiva oxytocinreceptorantagonister. Dessa föreningar som injicerades i den paraventrikulära kärnan i nanogrammängder förhindrade faktiskt fullständigt oxytocininducerad peniserektion, medan de, när de gavs i de laterala ventriklarna, förhindrade inte bara peniserektioner inducerade av oxytocin i sig, utan även läkemedelsinducerad peniserektion (se avsnitt 3 nedan och Argiolas och Melis, 1995, 2004, 2005 och referenser däri) och icke-kontakterektioner (Melis et al., 1999a), och var dessutom extremt effektiva för att försämra kopulatoriskt beteende hos sexuellt potenta hanråttor (Argiolas et al., 1988). Dessutom ökar sexuell interaktion FOS, genprodukten av den omedelbara tidiga genen c-fos i paraventrikulära oxytocinerga neuroner som projicerar till ryggmärgen och är involverade i kontrollen av peniserektion (se Witt och Insel, 1994 och referenser däri). Slutligen har sexuell impotens (t.ex. oförmåga hos en vuxen hanråtta att kopulera med en östrogen-progesteronprimerad receptiv hona) också associerats hos hanråttor med låga nivåer av oxytocin mRNA och kväveoxidsyntas i den paraventrikulära kärnan i hypotalamus (Benelli et al., 1995; Arletti et al., 1997) (för en omfattande översikt av dessa studier se Argiolas, 1999; Argiolas och Melis, 2004, 2005).
2.2. Den ventrala tegmentalområdet
Det ventrala tegmentala området upptäcktes först nyligen som ett hjärnområde där oxytocin inducerar erektion . Detta område innehåller oxytocinerga nervändar med ursprung i den paraventrikulära kärnan och oxytocinreceptorer (Freund-Mercier et al., 1987; Vaccari et al., 1998). Mer exakt visade sig oxytocin kunna inducera erektion när det injiceras ensidigt i kaudala området, men inte i det rostrala ventrala tegmentala området på ett dosberoende sätt (Melis et al., 2007). De aktiva doserna var högre än de som krävdes vid injicering i den paraventrikulära kärnan och liknade de som inducerar erektion när det injiceras i det ventrala subikula i hippocampus eller i den posteromediala kortikala kärnan i amygdala (se nedan). Tydligen medieras den pro-erektila effekten av aktiveringen av mesolimbiska dopaminerga neuroner som projicerar till skalet på nucleus accumbens, vilket i sin tur aktiverar ännu okända nervbanor som projicerar till de incerto-hypotalamiska dopaminerga neuronerna som påverkar paraventrikulära oxytocinerga neuroner som medierar penisektion (Melis et al., 2007, 2009a).
Beträffande mekanismen genom vilken oxytocin aktiverar dopaminerg neurotransmission i det ventrala tegmentala området, tyder tillgängliga data på att oxytocin stimulerar oxytocinerga receptorer belägna i cellkropparna hos mesolimbiska dopaminerga neuroner. Detta ökar Ca2+-inflödet inuti cellkropparna hos dopaminerga neuroner, vilket aktiverar kväveoxidsyntas (Succu et al., 2008). I motsats till den paraventrikulära kärnan (se avsnitt 3 nedan) aktiverar kväveoxid i sin tur guanylatcyklas, vilket ökar koncentrationen av cyklisk GMP. I linje med denna mekanism avskaffade antingen d(CH2)5Tyr(Me)2-Orn8-vasotocin, en potent oxytocin-antagonist, eller S-metyl-tio-l-citrullin, en potent hämmare av neuronalt kväveoxidsyntas, injicerat i det kaudala ventrala tegmentala området före oxytocin, penilektion och ökningen av extracellulär dopaminkoncentration i skalet på nucleus accumbens inducerad av oxytocin. Dessutom inducerar 8-bromocyklisk GMP, en aktiv fosfodiesterasresistent cyklisk GMP-analog, penilektion när den injiceras i det kaudala ventrala tegmentala området och ökar extracellulär dopaminkoncentration i skalet på nucleus accumbens, vilket observerats med oxytocin injicerat i det kaudala ventrala tegmentala området (Succu et al., 2008; Melis et al., 2009a) (se även Fig. 2).
Alltid i linje med denna mekanism minskar haloperidol, en potent dopamin D2-receptorantagonist, som injiceras i skalet på nucleus accumbens, penilektion inducerad av oxytocin injicerat i det ventrala tegmentala området (Melis et al., 2007). Ovanstående mekanism stöds också av dubbla immunofluorescensstudier, som visar att oxytocinfibrer träffar cellkropparna hos dopaminerga neuroner i det kaudala ventrala tegmentala området, vilka tidigare märkts med den retrograda spårämnet Fluorogold injicerat i skalet på nucleus accumbens (Melis et al., 2007; Succu et al., 2008). Aktiveringarna av dessa dopaminerga neuroner och dopaminreceptorer i nucleus accumbens leder i sin tur till aktivering av ännu inte identifierade nervbanor, vilka stimulerar incerto-hypotalamiska dopaminerga neuroner att frisätta dopamin i den paraventrikulära kärnan, varigenom oxytocinerga neuroner som projicerar till ryggmärgen och medierar peniserektion aktiveras (se ovan och Melis et al., 2007; Succu et al., 2007, 2008). Oxytocin injicerat i det kaudala ventrala tegmentala området i en dos som inducerade peniserektion ökade faktiskt den extracellulära dopaminkoncentrationen i dialysatet som erhölls inte bara från nucleus accumbens, utan även från den paraventrikulära kärnan (Succu et al., 2007).
2.3. Hippocampus
CA1-fältet i hippocampus var det andra hjärnområdet rikt på oxytocinerga fibrer och receptorer som identifierades i tidigare studier där injektion av oxytocin inducerade peniserektion (se Bujis, 1978; Sofroniew, 1983). Emellertid, i motsats till den paraventrikulära kärnan, fann man att oxytocin här endast kunde inducera peniserektion när det injicerades bilateralt och i högre doser än de som befanns aktiva i den paraventrikulära kärnan (Melis et al., 1986; Chen et al., 1992). Injektioner av oxytocin i subikulumet befanns vara inaktiva i dessa tidigare studier. Emellertid har nyare och mer noggranna mikroinjektionsstudier lett till identifieringen av en region i det ventrala subikulumet där injektion av oxytocin kunde inducera peniserektion på ett dosberoende sätt (Melis et al., 2009b). Den pro-erektila effekten av oxytocin injicerat i detta hjärnområde observerades vid doser liknande de som observerats aktiva i det ventrala tegmentala området efter unilateral injektion (Melis et al., 2007), liksom i den paraventrikulära kärnan. Tydligen inducerar oxytocin injicerat i det ventrala subikulumet penilektion genom att aktivera oxytocinerga receptorer i neuroner innehållande kväveoxidsyntas, vilket orsakar en ökning av kväveoxidproduktionen. Kväveoxid, i sin tur, genom att fungera som intercellulär budbärare, aktiverar glutaminsyraneurotransmission, vilket leder till penilektion, möjligen genom neurala (glutamaterga) efferenta projektioner från det ventrala subikulumet till extrahippocampala hjärnområden som modulerar aktiviteten hos mesolimbiska dopaminerga neuroner (t.ex. det ventrala tegmentala området, prefrontala cortex, den paraventrikulära kärnan) (se nedan och Melis, 2007, 2009b; Succu et al., 2008).
Denna verkningsmekanism stöds av intra-cerebrala mikrodialys-experiment, vilket visar att oxytocin injiceras i ventral subikulat vid doser som inducerar penile erektion, ökar kväveoxidproduktionen och extracellulär glutaminsyrakoncentration i dialysatet från ventral subikulum (Melis et al. , 2010) och extracellulär dopamin i nucleus accumbens (Melis et al., 2007). Dessa svar antagoniserades inte bara av oxytocinreceptorantagonisten d (CH2) 5Tyr (Me) 2-Orn8-vasotocin utan även av neuronal kväveoxid-syntasinhibitor S-metyl-tio-lcitrullin och med hjälp av kväveoxidavskiljande hemoglobin ges in i ventral subikulum några minuter innan oxytocin (Melis et al., 2010).
I linje med denna verkningsmekanism inducerar dessutom aktivering av glutamaterg neurotransmission genom NMDA injicerat i det ventrala subikulumet erektion (Melis et al., 2010). Fenotypen av efferenta utsprång från det ventrala subikulumet, vilka orsakar aktivering av mesolimbiska dopaminerga neuroner och ökning av extracellulärt dopamin i nucleus accumbens, är för närvarande okänd. Eftersom penilektion inducerad av oxytocin injicerat i det ventrala subikulumet sker samtidigt med en ökning av extracellulär glutaminsyra i dialysatet från det ventrala tegmentala området, men inte från nucleus accumbens, och antagoniseras av (+)MK-801, en potent icke-kompetitiv antagonist av excitatoriska aminosyrareceptorer av NMDA-subtypen (Woodruff et al., 1987), injicerad i det ventrala tegmentala området, men inte i nucleus accumbens (se Fig. 2 och Melis et al., 2009b), är det troligt att dessa projektioner leder till aktivering av glutamaterg neurotransmission i det ventrala tegmentala området, vilket i sin tur aktiverar mesolimbiska dopaminerga neuroner som projicerar till nucleus accumbens. Huruvida den ökade koncentrationen av glutaminsyra som finns i det ventrala tegmentala området efter oxytocininjektion i det ventrala subikulumet frisätts från neuroner med ursprung i subikulumet eller i andra hjärnområden (t.ex. prefrontala cortex) är för närvarande okänt. Detta orsakar dock aktivering av mesolimbiska dopaminerga neuroner och en ökad frisättning av dopamin i nucleus accumbens . Här leder aktiveringen av dopaminreceptorer till aktivering av incerto-hypotalamiska dopaminerga neuroner, vilket frisätter dopamin i den paraventrikulära kärnan, varigenom oxytocinerga neuroner som projicerar till ryggmärgen och medierar peniserektion aktiveras (se ovan och Melis et al., 2007, 2009a; Succu et al., 2008).
2.4. Amygdala
Amygdala är ett annat hjärnområde som är rik på oxytocinfibrer och receptorer (se Freund-Mercier et al., 1987; Vaccari et al., 1998; Uhl-Bronner et al., 2005). Oxytocin här antas vara involverad i olika funktioner, från anxiolys, socialt minne och kognition, socialt förstärkt lärande, känslomässig empati, emotionell ansiktsbehandling och rädsla hos människor för erektil funktion och sexuellt beteende (se Kondo et al., 1998; Dominguez et 2001; Ebner et al., 2005; Huber et al., 2005; Domes et al., 2007; Petrovic et al., 2008; Lee et al., 2009; Donaldson and Young, 2009; Hurlemann et al. , 2010). Emellertid upptäckte oxytocins förmåga att inducera penis erektion hos hanrotter när de inducerades i amygdala posteromediala kortikala kärnan endast nyligen (Melis et al., 2009b). Detta svar inträffade samtidigt med en ökning av extracellulär dopaminkoncentration i dialysatet erhållet från kärnans accumbens skal, vilket hittades efter injektion av oxytocin i ventral subikulum (Melis et al., 2009b). Mekanismen genom vilken oxytocin injiceras i amygdalas posteromediala kortikala kärna inducerar penile erektion är okänd för tillfället. De tillgängliga data visar att både penil erektion och ökningen av extracellulär dopaminkoncentration i dialysatet erhållet från nukleinsubstanserna medieras av aktiveringen av oxytocinerga receptorer, eftersom båda svaren avskaffades av oxytocinreceptorantagonisten d (CH2) 5Tyr ( Me) 2-Orn8-vasotocin injiceras i amygdala-kärnan några minuter före oxytocin (Melis et al., 2009b).
Oavsett vilken mekanism oxytocin aktiverar i amygdalas posteromediala kortikala kärna, upphävs den sexuella responsen som induceras av peptiden genom blockering av alla dopaminerga receptorer med cis-flupentixol injicerat i skalet på nucleus accumbens och genom blockering av NMDA-receptorer med (+)MK-801 injicerat i det ventrala tegmentala området, men inte i nucleus accumbens, vilket observerats för penilektion inducerad av oxytocin injicerat i det ventrala subikulumet (Melis et al., 2009b). Detta tyder på att oxytocin injicerat i amygdalas posteromediala kärna aktiverar glutaminsyra-neurotransmission i det ventrala tegmentala området. Detta orsakar i sin tur aktivering av mesolimbiska dopaminerga neuroner, vilket leder till penilektion. Mot bakgrund av studier som visar nervbanor som förbinder denna kärna i amygdala med det ventrala subikulumet (Canteras et al., 1995; French och Totterdell, 2003), ökar dessa fynd möjligheten att en interaktion kan existera mellan dessa två hjärnområden, även om direkta banor från amygdala antingen till nucleus accumbens eller till det ventrala tegmentala området har beskrivits (Kelley och Domesick, 1982; Witter, 2006).
2.5. Ryggmärgen
Ryggmärgen är ett annat område i det centrala nervsystemet som innehåller oxytocinerga fibrer och receptorer (Freund-Mercier et al., 1987, Uhl-Bronner et al., 2005), där oxytocin inducerar penile erektion (Tang et al., 1998 Veronneau-Longueville et al., 1999; Giuliano och Rampin, 2000; Giuliano et al., 2001). Som ovan nämnts härstammar dessa oxytocinerga fibrer i hypothalamusens paraventrikulära kärna och bidrar till nedåtgående vägar som styr spinal autonoma neuroner som medierar penile erektion. Faktum är att dessa fibrer gör synaptiska kontakter i dorsalhorn preganglioniska sympatiska och parasympatiska cellkolumnerna i thoraco-ländryggen och lumbo-sacralkanalen med ryggmärgsneuroner innervating penile cavernous corpora (Marson och McKenna, 1996, Giuliano och Rampin, 2000; Giuliano et al. , 2001). Dessa synaptiska kontakter demonstrerades genom märkning av ryggmärgsneuroner med ursprung i penis och nåde ryggmärgen med specifika retrograde spårämnen injicerade i cavernous corpora kombinerat med dubbel immunofluorescens och konfokal lasermikroskopi studier (Tang et al., 1998, Veronneau-Longueville et al., 1999). I linje med dessa studier, ökade intrakavernöst tryck i bedövade manliga råttor intratekal injektion av kumulativa doser av oxytocin vid lumbo-sakralet, men inte vid thoraco-lumbalnivå, på ett dosberoende sätt. Dessa effekter avskaffades genom blockaden av oxytocinergreceptorn med d (CH2) 5Tyr (Me) 2-Orn8-vasotocin och genom sektionen av bäckennaverna (Giuliano och Rampin, 2000; Giuliano et al., 2001). Dessa resultat visar att oxytocin, som verkar vid den lumbo-sacrala ryggmärgen, ökar intracavernöst tryck och föreslår att oxytocin, som frigörs under fysiologisk aktivering av den paraventrikulära kärnan, är en potent aktivator av ryggmärgs-pro-erektile neuroner som skjuter ut till den cavernösa korporan. Intressant är att dessa pro-erektila spinalneuroner, på vilka oxytocin verkar utöva sin pro-erektila effekt, också mottar synaptiska kontakter från serotoninerga neuroner med ursprung i kärnparagigantocellularis av retikulär bildning av medulla oblongata (Marson och McKenna, 1992; Tang et al ., 1998). Destruktion av dessa serotoninerga neuroner underlättar ejakulations- och penisreflexer hos hanrotter (Marson och McKenna, 1992; Yells et al., 1992). Eftersom läkemedel som stimulerar 5HT2C-receptorer underlättar penile erektion när de ges intracerebroventrikulärt men inte in i paraventrikulärkärnan och läkemedel som blockerar 5HT2C-receptorer minskar även dopaminagonist- och oxytocininducerad penile erektion, medan dopaminantagonister inte minskar 5HT2C-agonistinducerad penile erektion ( se Stancampiano et al., 1994 och referenser däri) har det också föreslagits att oxytocin underlättar verkan av pro-erektile 5HT2C-receptorer vid nivån av den lumbo-sacrala ryggmärgen (Stancampiano et al., 1994). Alternativt kan oxytocin påverka aktiviteten hos ryggradssänkande serotoninerga neuroner genom att verka direkt i kärnparagigantocellularis, där dessa neuroner härstammar (se Stancampiano et al., 1994). I linje med denna möjlighet har en oxytocinerg signalväg som har sitt ursprung i den paraventrikulära kärnan och når nucleus paragigantocellularis i den retikulära formationen i medulla oblongata beskrivits (Bancila et al., 2002), och aktiveringen av 5HT2C-receptorer belägna i ryggmärgen nedströms dopamin- och oxytocinreceptorer anses vara en vanlig mekanism för den pro-erektila effekten av dessa föreningar och även av ACTH-MSH-peptider (Kimura et al., 2008).
3. Interaktioner mellan oxytocin, dopamin och glutaminsyra i centrala nervsystemet och penis erektion
Som nämnts i avsnitt 1 har alla oxytocinerga neuroner i det centrala nervsystemet sitt ursprung i den paraventrikulära kärnan och omgivande strukturer. Aktiviteten hos dessa neuroner styrs av olika neurotransmittorer och/eller neuropeptider. Bland de mest studerade på paraventrikulär nivå finns dopamin, glutaminsyra, gamma-aminosmörsyra (GABA), kväveoxid, endokannabinoider, opioidpeptider, tillväxthormonfrisättande peptider, VGF-relaterade peptider och oxytocin i sig. Dopamin, glutaminsyra, tillväxthormonfrisättande peptider, VGF-deriverade peptider och oxytocin är stimulerande, t.ex. underlättar dessa föreningar och deras agonister peniserektion när de injiceras i den paraventrikulära kärnan, medan GABA, opioidpeptider och endokannabinoider är hämmande, t.ex. hämmar dessa föreningar eller deras agonister peniserektion (se Meisel och Sachs, 1994; Witt och Insel, 1994; Argiolas och Melis, 1995, 2004, 2005; Giuliano och Rampin, 2000, 2004; McKenna, 2000; Andersson, 2001; Hull et al., 2002).
Flera rader av experimentella bevis tyder på att dessa oxytocinerga neuroner och de ovan nämnda neurotransmittorerna och neuropeptiderna är involverade i kontrollen av erektil funktion och sexuellt beteende i olika fysiologiska sammanhang. Dessutom kan oxytocin som frigörs i extrahypotalamiska hjärnområden, såsom det ventrala tegmentala området, hippocampusen och dess regioner, amygdala och ryggmärgen påverka aktiviteten hos de neuroner på vilka oxytocinerga synapser påverkar. För närvarande är de enda neuronerna som är viktiga för penile erektion, vilka oxytocinerga synapser påvisar, identifierade med säkerhet, cellkroppar av mesolimbiska dopaminerga neuroner i det kaudala ventrala tegmentala området som skjuter ut till kärnan hos kärnblocken (Melis et al., 2007 Succu et al., 2008), och de pro-erektila ryggmärgsnuronerna som utskjuter från lumbo-sakralvägen till den cavernösa korporan (se Giuliano och Rampin, 2000, Giuliano et al., 2001) (se även sektionerna 2.2 och 2.5) . Även om oxytocinerga synapser och receptorer också har identifierats i ventral subikulum, amygdala och ryggmärg, områden som är viktiga för penis erektion (se ovan), i dessa områden är typen av neurotransmittor / s närvarande i neuronerna på vilka oxytocinerga nervändar inträffar, är fortfarande okända.
Denna del av översikten sammanfattar kortfattat den aktuella litteraturen om mekanismerna bakom den pro-erektila effekten av oxytocin injicerat i det kaudala ventrala tegmentala området, det ventrala subikulumet i hippocampus och i ryggmärgen. Särskild uppmärksamhet ägnas åt peptidens interaktion med dopamin och glutaminsyra i dessa områden och den roll denna interaktion kan spela i den centrala kontrollen av erektil funktion. En kort sammanfattning av effekterna av dopamin och glutaminsyra på oxytocinerga neuroner i den paraventrikulära kärnan, vilka också spelar en nyckelroll i erektil funktion, ges först, för att göra läsaren medveten om det tidiga forskningsläget inom detta område, eftersom dessa studier redan har granskats utförligt (se Argiolas och Melis, 1995, 2004, 2005; Melis och Argiolas, 2003). Även i detta fall ägnas särskild uppmärksamhet åt de senaste resultaten, vilka tyder på en viktig roll för både en dopamin-oxytocin-koppling och en glutaminsyra-oxytocin-koppling, inte bara i sexuell prestation (peniserektion och samlagning), utan även i sexuell upphetsning och sexuell motivation.
3.1. Dopamin-oxytocin-interaktion i den paraventrikulära kärnan
Dopaminagonisters förmåga att inducera peniserektion genom att aktivera centrala oxytocinerga neuroner föreslogs omedelbart efter upptäckten att apomorfin inducerar peniserektion när det injiceras i den paraventrikulära kärnan (Melis et al., 1987) när oxytocinreceptorantagonisten d(CH2)5Tyr(Me)2-Orn8-vasotocin injicerat intracerebroventrikulärt (ICV) befanns kunna minska nästan helt peniserektion inducerad inte bara av oxytocin givet ICV, utan även av apomorfin givet subkutant (Argiolas et al., 1987b). Dessa resultat följdes av resultat från andra studier som visade liknande resultat när d(CH2)5Tyr(Me)2-Orn8-vasotocin gavs intravenöst och apomorfin gavs direkt i den paraventrikulära kärnan (Melis et al., 1989b), vilket ledde till att antyda att dopaminagonister inducerar erektion genom att aktivera paraventrikulära oxytocinerga neuroner som projicerar till extrahypotalamiska hjärnområden och i synnerhet till ryggmärgen (se Argiolas och Melis, 1995, 2004, 2005). I linje med denna hypotes har man nyligen funnit att blockad av lumbosakrala oxytocinerga receptorer av en icke-peptidbaserad oxytocinreceptorantagonist hos sövda råttor kan avskaffa apomorfininducerade ökningar av intrakavernöst tryck inducerat av dopaminagonisten apomorfin, vilket ger bevis för en paraventrikulo-spinal oxytocinerg väg involverad i penilektion (Baskerville et al., 2009).
Studier som syftar till att identifiera den dopaminreceptor som är ansvarig för induktion av penilektion visade att även i den paraventrikulära kärnan inducerar dopaminreceptoragonister penilektion genom att verka på dopaminreceptorer i D2-familjen , vilket observerats med dopaminreceptoragonister som ges systemiskt (se Melis et al., 1987; Eaton et al., 1991; Melis och Argiolas, 1995a). Följaktligen fann man att apomorfin, en potent blandad D1/D2-receptoragonist, och kinpirol, en potent selektiv D2-receptoragonist, men inte SKF 38393, en selektiv D1-receptoragonist, injicerade i denna hypotalamiska kärna, kunde inducera penilektion på ett dosberoende sätt, och det sexuella svaret som inducerades av dessa D2-receptoragonister eliminerades av D2-receptorantagonister, såsom haloperidol och l-sulpirid, men inte av SCH 23390, en selektiv D1-receptorantagonist (Melis et al., 1987). Apomorfins förmåga att inducera erektion vid injektion i den paraventrikulära kärnan bekräftades också genom telemetristudier som visade att dopaminagonisten som ges i den paraventrikulära kärnan kan öka det intrakavernösa trycket hos vakna hanråttor utan att modifiera det systemiska blodtrycket (Chen et al., 1999; Giuliano och Allard, 2001), vilket observerades efter systemisk injektion (Bernabè et al., 1999). Dessa studier bekräftade också en huvudroll för D2-receptorer, eftersom D1-receptoragonister vanligtvis inte kunde öka det intrakavernösa trycket vid injektion i den paraventrikulära kärnan (Chen et al., 1999).
Flera experimentella bevis fanns då tillgängliga som tyder på att paraventrikulära D2-receptorer, vars stimulering inducerar erektion, är belägna på cellkropparna hos oxytocinerga neuroner. För det första innehåller den paraventrikulära kärnan dopaminerga nervterminaler som tillhör de så kallade incertohypotalamiska dopaminerga neuronerna. Cellkropparna hos dessa neuroner är belägna i A13- och A14-gruppen av Dahlstrom och Fuxe (1964), arboriserar i stor utsträckning och innerverar flera hypotalamiska strukturer, inklusive paraventrikulära oxytocinerga neuroner som projicerar till neurohypofysen och/eller till extrahypotalamiska hjärnområden (Buijs et al., 1984; Lindvall et al., 1984).
Inblandningen av dessa dopaminerga neuroner vid paraventrikulär nivå i kontrollen av penile erektion och sampolymerisering stöds av mikrodialysstudier som visar att koncentrationerna av extracellulär dopamin och 3,4-dihydroxifenylättiksyra (DOPAC), dess huvudmetabolit, ökas i dialysatet erhållet från Paraventrikulära kärnor av sexuellt potenta manliga råttor som uppvisar kontaktfria erektioner när de sätts i närvaro av en otillgänglig ovariektomiserad östrogen + progesteronprimerad mottaglig kvinna (Melis et al., 2003).
Ökningen av dopamin- och DOPAC-koncentrationerna var ännu högre när kopulation med den receptiva kvinnan tilläts (Melis et al., 2003), vilket observerades i det mediala preoptiska området (Hull et al., 1995) och i nucleus accumbens (Pfaus och Everitt, 1995). För det andra visar flera studier att erektion inducerad av stimulering av paraventrikulära D2-receptorer medieras av oxytocin som frisätts i dessa områden. Följaktligen visade sig apomorfin givet i doser som inducerar erektion kunna öka oxytocinkoncentrationen, inte bara i plasma hos råttor och apor (Melis et al., 1989a; Cameron et al., 1992), utan även i extrahypotalamiska hjärnområden, såsom hippocampus (Melis et al., 1990). I linje med dessa resultat har det nyligen visats att apomorfin injicerat i den paraventrikulära kärnan i en dos som inducerar penilektion även kan öka extracellulär dopaminkoncentration i nucleus accumbens, en effekt som minskas av oxytocinreceptorantagonisten d(CH2)5Tyr(Me)2-Orn8-vasotocin injicerat i det ventrala tegmentala området (Succu et al., 2007; Melis et al., 2009a) (se även avsnitt 4). För det tredje, bilaterala elektrolytiska lesioner i den paraventrikulära kärnan, som nästan helt eliminerar oxytocin från extrahypotalamiska hjärnområden (Hawthorn et al., 1985), upphäver apomorfininducerad peniserektion (Argiolas et al., 1987a), och selektiva oxytocinreceptorantagonister som ges i de laterala ventriklarna, men inte i den paraventrikulära kärnan, minskar dosberoende apomorfininducerad peniserektion med en potens parallell med dessa föreningars när det gäller att blockera oxytocinreceptorer (Melis et al., 1989b). Oxytocinreceptorantagonister är också extremt potenta för att minska underlättandet av manligt sexuellt beteende inducerat inte bara av oxytocin, utan även av apomorfin (Argiolas et al., 1988, 1989).
Beträffande mekanismen genom vilken D2-receptorer aktiverade av dopamin eller dopaminreceptoragonister ökar aktiviteten hos oxytocinerga neuroner, och därigenom frisätter oxytocin i extrahypotalamiska hjärnområden och i ryggmärgen, stöder ett flertal experimentella data hypotesen att stimulering av D2-receptorer ökar koncentrationen av intracellulära Ca2+-joner inuti cellkropparna hos oxytocinerga neuroner, vilket leder till aktivering av kväveoxidsyntas, ett Ca2+-kalmodulinberoende enzym, som finns i dessa cellkroppar (Vincent och Kimura, 1992; Torres et al., 1993; Sanchez et al., 1994; Sato-Suzuki et al., 1998). Den ökade kväveoxidproduktionen orsakar i sin tur aktivering av oxytocinerga neuroner. Följaktligen (1) förhindrades apomorfininducerad erektion av organiska kalciumkanalblockerare och av _-konotoxin GVIA, en potent och selektiv blockerare av spänningsberoende Ca2+-kanaler av N-typ (McCleskey et al., 1987), givet i den paraventrikulära kärnan (se Argiolas et al., 1990, och referenser däri); (2) apomorfininducerad erektion förhindrades av kväveoxidsyntas-hämmare givet i den paraventrikulära kärnan (Melis et al., 1994c); och (3) apomorfin och andra D2-receptoragonister givet i doser som inducerar erektion ökade kväveoxidproduktionen i det paraventrikulära dialysatet som erhölls genom intracerebral mikrodialys, en ökning som minskades av hämmare av paraventrikulärt kväveoxidsyntas givet i doser som minskar D2-receptoragonistinducerad erektion (Melis et al., 1996). Mekanismen med vilken kväveoxid aktiverar paraventrikulära oxytocinerga neuroner är fortfarande okänd, även om tillgängliga data tyder på att kväveoxid fungerar som en intracellulär budbärare och att guanylatcyklas inte är involverat. Faktum är att den aktiva fosfodiesterasresistenta analogen av cyklisk GMP, 8-bromcyklisk GMP, inte kunde inducera erektion när den administrerades i den paraventrikulära kärnan (Fig. 2) (se Melis och Argiolas, 1995b och referenser däri).
Ovanstående tolkning har ofta ansetts vara oövertygande, främst eftersom stimuleringen av dopamin D2-receptorer vanligtvis är kopplad till hämning snarare än excitation av cellkropparna i de neuroner som innehåller dessa receptorer genom olika G-proteinkopplade mekanismer (se Sokoloff och Schwartz, 1995). En möjlig förklaring till denna skillnad, som är i linje med en direkt stimulering av paraventrikulära oxytocinerga neuroner av dopamin, har dock nyligen föreslagits genom upptäckten av en G-proteinkopplad dopamin D4- receptor, en medlem av D2-receptorfamiljen (D2, D3 och D4), vars stimulering ökar Ca2+-inflödet i cellpreparat som innehåller en klonad version av denna receptorsubtyp (Moreland et al., 2004). Ännu viktigare är att en selektiv D4-receptoragonist (t.ex. ABT 724) (N-metyl-4-(2-cyanofenyl)piperazynil-3-metylbensamidmaleat) befanns kunna inducera penisektion hos hanråttor när den ges systemiskt (Brioni et al., 2004). Denna effekt observerades inte med den selektiva D2-receptorsubtypagonisten PNU-95666E (R-5,6-dihydro-N,N-dimetyl-4Himidazo[4,5,1-i]kinolin-5-amin) (Hsieh et al., 2004), som inte heller kunde öka Ca2+-inflödet i cellpreparaten innehållande den klonade versionen av D4-receptorsubtypen (Brioni et al., 2004; Moreland et al., 2004). I linje med ovanstående hypotes och fynd fann man att PD 168,077 (N-metyl-4-(2-cyanofenyl)piperazynil-3-metylbensamidmaleat), PIP-3EA (2-[4-(2-metoxifenyl)piperazin-1-ylmetyl]imidazo[1,2-a]pyridin) och andra selektiva D4-receptoragonister (Heier et al., 1997; Melis et al., 2006b; Löber et al., 2009) kunde inducera erektion vid systemisk injektion, intravenöst injicering och injektion i den paraventrikulära kärnan, dock mindre effektivt än apomorfin. Den pro-erektila effekten av dessa D4-receptoragonister förhindrades av L-745,870 (3-(4-[klorfenyl]piperazin-1-yl)-metyl-1H-pyrrolo[2,3-B]pyridintrihydroklorid), en selektiv D4-receptorantagonist (Patel et al., 1997; Melis et al., 2005, 2006b; Löber et al., 2009).
Slutligen reducerades även den pro-erektila effekten av ovanstående D4-receptoragonister med hjälp av kväveoxid-syntasinhibitorer, given i den paraventrikulära kärnan och av d (CH2) 5Tyr (Me) 2-Orn8-vasotocin, en selektiv oxytocinreceptorantagonist givet icv men inte i den paraventrikulära kärnan. Dessa resultat ligger i linje med hypotesen att D4-receptoragonister också stimulerar oxytocinerga neuroner genom att aktivera kväveoxid-syntas och frigöra oxytocin i extrahypotalamiska hjärnområden, vilket i sin tur underlättar penis erektion, vilket visas för apomorfin och klassiska D2-agonister (Melis et al ., 2005, 2006b; Löber et al., 2009).
Ovanstående fynd stöder också hypotesen att dopamin inducerar erektion genom att verka på D4-receptorer belägna på cellkropparna hos paraventrikulära oxytocinerga neuroner, och vilka orsakar ett ökat Ca2+-inflöde i cellkropparna hos oxytocinerga neuroner, vilket leder till en ökad kväveoxidproduktion. Kväveoxid aktiverar i sin tur oxytocinerga neuroner för att frisätta oxytocin i extrahypotalamiska hjärnområden och i ryggmärgen, som redan diskuterats. I detta avseende är det anmärkningsvärt att dopaminreceptorer har identifierats i cellkropparna hos oxytocinerga neuroner i den paraventrikulära kärnan först nyligen genom dubbla immunofluorescensstudier med högselektiva D2-, D3- och D4-receptorantikroppar och med oxytocinantikroppar. Dessa studier har visat uttryck av alla tre D2-receptorsubtyper (D2, D3 och D4), vilka samlokaliserades separat i cellkropparna hos oxytocinerga neuroner i den paraventrikulära kärnan (och även i den supraoptiska kärnan och det mediala preoptiska området) (Baskerville och Douglas, 2008; Baskerville et al., 2009).
Detta ger starkt neuroanatomiskt stöd för möjligheten att dopamin och dopaminreceptoragonister av D2-typen inducerar erektion genom att direkt aktivera oxytocinerga neuroner som projicerar till de extrahypotalamiska hjärnområdena som nämnts ovan , t.ex. ryggmärgen, det ventrala tegmentala området, hippocampus och amygdala. Dessa fynd ger dock ingen hjälp för att identifiera D2-receptorsubtypen/subtyperna, vars stimulering orsakar det erektila svaret. Tyvärr kan ingen hjälp erhållas ens från studier som syftar till att identifiera oxytocinerga neuroner som aktiveras av dopaminreceptoragonister i den paraventrikulära kärnan. Trots den olika aktiviteten på de olika dopaminreceptorsubtyperna orsakar antingen blandade dopaminreceptoragonister (t.ex. apomorfin), selektiva D2-receptoragonister (t.ex. kinpirol, som verkar på alla D2-receptorsubtyper) eller selektiva D4-receptoragonister aktiveringen av oxytocinerga neuroner, mätt genom ökningen av FOS-protein i parvocellulära oxytocinerga neuroner i den paraventrikulära kärnan (Bitner et al., 2006). Detta fynd har dock nyligen ifrågasatts, eftersom ökningen av FOS-protein i paraventrikulära oxytocinerga neuroner endast hittades när peniserektion inducerades av kinerolan, som huvudsakligen verkar på D2- och D3-receptorsubtyper, men inte av PD 168077, en D4-receptoragonist, trots båda föreningarnas förmåga att inducera det sexuella svaret (Baskerville et al., 2009).
Ytterligare experiment med selektiva agonister av de andra D2-receptorsubtyperna (huvudsakligen D2 och D3) är sedan nödvändiga för att identifiera den exakta rollen av varje dopaminreceptorsubtyp i kontrollen av erektilfunktionen vid paraventrikulär nivå. I detta hänseende är apomorfin, som allmänt verkar på alla dopaminreceptorsubtyper (se Brioni et al., 2004 och referenser däri), mycket effektivare än D4-receptorer agonister vid inducerande penil erektion när de injiceras i paraventrikulära kärna. Detta kan förklaras av en högre affinitet av apomorfin på D4-receptorer jämfört med den hos de testade D4-receptoragonisterna eller alternativt kan D4-receptoragonister fungera som partiella agonister för D4-receptor eller samtidig behandling av olika dopaminreceptorsubtyper av apomorfin kan producerar en högre aktivering av oxytocinerga neuroner medierande penil erektion, än aktiveringen av D2-receptoragonister av D4-receptorsubtypen.
Interaktioner mellan dopamin D1- och D2-receptorer har redan beskrivits för kontroll av sexuellt beteende på nivån av det mediala preoptiska området (se Hull et al., 1989). I det fall att selektiva D2-receptoragonisters oförmåga att inducera penisektion (Hsieh et al., 2004) kommer att bekräftas (men se Depoortère et al., 2009), till exempel även efter injektion av dessa föreningar i den paraventrikulära kärnan, bör en viktig roll för D3-receptorer ensamma eller tillsammans med D4-receptorerna i aktiveringen av oxytocinerga neuroner som medierar penisektion analyseras i detalj (se Baskerville et al., 2009). Tyvärr är selektiva D2- och D3-receptoragonister (t.ex. som skiljer sig åt i sin affinitet för dessa två receptorsubtyper med minst fyra/fem storleksordningar in vitro) inte tillgängliga för närvarande. Av denna anledning behöver det nyligen genomförda förslaget att D3-receptorer medierar peniserektion inducerad av klassiska D2-receptoragonister, vilket huvudsakligen baseras på förmågan hos förmodade D3-receptorantagonister karakteriserade i in vitro-experiment, att minska peniserektion inducerad av klassiska D2-agonister, såsom apomorfin, kinpirol och pramipexol, vilka kraftigt aktiverar alla dopamin D2-receptorsubtyper (Collins et al., 2009), definitivt valideras med andra experiment. Denna validering är också nödvändig eftersom ingen effekt av D4-receptoragonister på peniserektion hittades i denna studie, i slående kontrast till resultaten från de ovan nämnda studierna, vilka visar en pro-erektil effekt av D4-receptoragonister. Faktum är att inte ens apomorfins förmåga att inducera penisektion (och gäspning) hos D4-receptor-knockout-möss med en potens identisk med den som ses hos vildtyps-D4-receptor-knockout-möss och D3-receptorantagonisters förmåga att upphäva apomorfinsvaret hos dessa djur (Collins et al., 2009) kan betraktas som ett definitivt bevis för en selektiv roll för D3-receptorsubtypen i D2-receptoragonistinducerad penisektion. Bortsett från artskillnader har studier med neurotransmittor-/neuropeptid- och/eller neurotransmittor-/neuropeptidreceptor-genablation (neurotransmittor-/neuropeptid- och/eller neurotransmittor-/neuropeptidreceptor-knockout-djur) vanligtvis bidragit till ytterligare förvirring och komplikationer i bekräftelsen av den förmodade sexuella rollen hos neurotransmittorer och/eller neuropeptider och deras receptorer. Oxytocin-genablation producerar nämligen oxytocin-knockout-möss som parar sig och kopulerar normalt, som om oxytocin var onödigt för parning och kopulation. Även homozygota honmöss med oxytocin-knockout uppvisar normal parning och förlossning, dock med en markant försämrad mjölkproduktion (Nishimori et al., 1996; Young et al., 1996). Ablationen av genen som kodar för neuronalt kväveoxidsyntas producerar också kväveoxidsyntas-knockout-möss som parar sig och kopulerar normalt (Huang et al., 1993). Detta sker trots att kväveoxidsyntas producerar kväveoxid, som är en av de viktigaste fysiologiska mediatorerna av peniserektion på penisnivå (Burnett et al., 1992; Rajfer et al., 1992) och på central nivå, i den paraventrikulära kärnan i hypotalamus (Argiolas, 1994; Benelli et al., 1995; Melis et al., 1998). Dessa fynd tyder dock förmodligen på ett viktigt särdrag i reproduktionsfysiologin, dvs. redundansen hos de system som är involverade i dess kontroll på central och perifer nivå.
Sådan redundans har säkerligen ett evolutionärt ursprung, eftersom den garanterar geners överföring till nästa generation för artens överlevnad. Därför tyder det faktum att ablation av D4-receptorgenen inte förändrar den pro-erektila effekten av apomorfin på att D4-receptorer, liksom oxytocin och kväveoxid, bara är några av de mediatorer som verkar i de system som kontrollerar erektil funktion, snarare än att antyda att det inte finns någon roll för dessa receptorer i kontrollen av penisektion och sexuellt beteende. Misslyckandet hos D4-agonister att inducera penisektion när de ges systemiskt till hanråttor av olika stammar har nyligen rapporterats i en annan studie (Depoortère et al., 2009). Men i motsats till Collins et al.s arbete ... (2009), och för att göra bilden av de olika D2-receptorsubtypernas roll i kontrollen av penisektion ännu mer förbryllande, visar denna studie också att förmodade selektiva D3-receptorantagonister som gavs systemiskt inte kunde minska apomorfininducerad penisektion hos hanråttor av den stammen som är mer känslig för den pro-erektila effekten av apomorfin, medan det sexuella svaret (och gäspningen) motverkades av den selektiva D2-antagonisten L-741,626 (3-[[4-(4-klorfenyl)-4-hydroxipiperidin-1-yl]metyl-1H-indol), vilket ledde författarna till att föreslå att D2-receptorer, snarare än D3- och D4-receptorer, är de som spelar en viktig roll i D2-agonistinducerad penisektion (Depoortère et al., 2009). Slutligen kan möjligheten att den exciterande effekten av dopaminreceptoragonister på oxytocinerga neuroner som medierar penisektion, åtminstone delvis, är indirekt snarare än direkt, t.ex. medierad eller påverkad av förändringar i aktiviteten hos andra neurotransmittorer, neuropeptider, som kan modulera aktiviteten hos oxytocinerga neuroner i den paraventrikulära kärnan, inte helt uteslutas.
3.2. Glutaminsyra-oxytocin-interaktion i den paraventrikulära kärnan
Hypotalamus paraventrikulära kärna är mycket rik på synapser som innehåller en exciterande aminosyra som neurotransmittor (t.ex. glutaminsyra och asparaginsyra ) (Van Den Pol, 1991). Exciterande aminosyror i denna kärna är involverade i ett flertal funktioner, inklusive erektion och sexuellt beteende (Roeling et al., 1991; Melis et al., 1994b, 2000, 2004b). Följaktligen befanns N-metyl-d-asparaginsyra (NMDA), en selektiv agonist av NMDA-receptorsubtypen, men inte (±)-_-amino-3-hydroxi-5-metyl-isoxazol-4-propionsyra (AMPA), en selektiv agonist av AMPA-receptorsubtypen eller (±)-trans(1)-amino-1,3-cyklopentandikarboxilsyra (ACPD), en selektiv agonist av den metabotropa receptorsubtypen, kunna inducera penilektion när den injiceras i den paraventrikulära kärnan hos fritt rörliga råttor (Melis et al., 1994b). Den pro-erektila effekten av 948 MR Melis, A. Argiolas / Neuroscience and Biobehavioral Reviews 35 (2011) 939-955 NMDA förhindrades av (+)MK-801, en icke-kompetitiv NMDA-receptorantagonist (Woodruff et al., 1987), injicerad i den paraventrikulära kärnan (Melis et al., 1994b). I linje med dessa resultat fann man i telemetristudier som syftade till att övervaka intrakavernöst tryck att NMDA var mycket mer aktivt än agonister av de andra exciterande aminosyrareceptorsubtyperna när det injicerades i den paraventrikulära kärnan för att öka det intrakavernosala trycket hos vakna eller sövda hanråttor (Zahran et al., 2000; Chen och Chang, 2003).
Som föreslagits ovan för oxytocin och dopamin är det troligt att NMDA-receptorer som medierar penilektion är belägna i cellkropparna hos oxytocinerga neuroner, eftersom exciterande aminosyranervändar träffar oxytocinerga cellkroppar i den paraventrikulära kärnan (Van Den Pol, 1991). I analogi med vad som observerats med dopaminreceptoragonister medieras den pro-erektila effekten av NMDA tydligen av aktiveringen av oxytocinerg neurotransmission, som upphävs av oxytocin-antagonisten d(CH2)5Tyr(Me)2-Orn8-vasotocin givet icv, men inte in i den paraventrikulära kärnan (se Argiolas och Melis, 1995, 2004, 2005 och referenser däri). Likaså är NMDA-inducerad aktivering av oxytocinerg neurotransmission sekundär till aktiveringen av kväveoxidsyntas, eftersom NMDA-inducerad penilektion förhindras av kväveoxidsyntas-hämmare (N-nitro-N-metyllargininmetylester och N-metyltio-l-citrullin) som ges i den paraventrikulära kärnan, och NMDA injicerat i den paraventrikulära kärnan i doser som inducerar penilektion, ökar kväveoxidproduktionen i hypotalamuskärnan (se Argiolas och Melis, 1995, 2004, 2005 och referenser däri). När det gäller dopaminreceptoragonister kan den NMDA-inducerade aktiveringen av kväveoxidsyntas också vara sekundär till ett ökat Ca2+-inflöde i oxytocinerga cellkroppar genom de Ca2+-kanalkopplade NMDA-receptorerna, vilket visats i flera neurala preparat (för en översikt se Snyder, 1992; Southam och Garthwaite, 1993; Schuman och Madison, 1994 och referenser däri). Kväveoxid aktiverar i sin tur oxytocinerg neurotransmission (se ovan). Ursprunget till glutamaterga projektioner som aktiverar paraventrikulära oxytocinerga neuroner som medierar peniserektion är okänt, även om vissa neuroanatomiska och elektrofysiologiska bevis tyder på att de kan ha sitt ursprung, åtminstone delvis, i hippocampus (Saphier och Feldman, 1987; Chen et al., 1992). Även om ytterligare arbete är nödvändigt för att bättre karakterisera ursprunget till de glutamaterga utsprången till den paraventrikulära kärnan, stöds glutaminsyrans inblandning i den paraventrikulära kärnan i kontrollen av penilektion och sexuellt beteende tydligt av mikrodialysstudier. Följaktligen ökade de extracellulära koncentrationerna av glutaminsyra och asparaginsyra i dialysatet som erhölls från den paraventrikulära kärnan hos hanråttor som uppvisade kontaktlösa erektioner när de placerades i närvaro av oåtkomliga östrogen + progesteron-primerade receptiva honråttor (Melis et al., 2004b), penile erektioner som också medieras av aktivering av central oxytocinerg transmission (Melis et al., 1999a,b). Sådana ökningar observerades ännu högre när kopulation med den receptiva honan tilläts (Melis et al., 2004a). I linje med hypotesen att en ökad aktivitet av exciterande aminosyror sker i den paraventrikulära kärnan under penilektion och kopulation, minskas både kontaktlösa erektioner och kopulatoriskt beteende (under vilket penile erektioner sker i copula) genom blockad av NMDA-receptorer i den paraventrikulära kärnan, och denna minskning följs av en minskning av ökningen av kväveoxidproduktion som sker i denna hypotalamiska kärna i dessa fysiologiska sammanhang (Melis et al., 2000). En ökning av extracellulär glutaminsyrakoncentration sekundärt till en minskad GABA-frisättning från GABAerga nervändar som påverkar exciterande aminosyraerga synapser intill oxytocinerga cellkroppar, observerades också i den paraventrikulära kärnan efter blockad av cannabinoid-CB1-receptorer av CB1-antagonisten SR 141761A, givet i de laterala ventriklarna eller direkt i den paraventrikulära kärnan i doser som inducerar penilektion (se Succu et al., 2006; Castelli et al., 2007). En sådan ökning ledde till aktivering av kväveoxidsyntas i cellkropparna hos oxytocinerga neuroner, vilket ökade kväveoxidproduktionen. Kväveoxid aktiverar i sin tur oxytocinerga neuroner som medierar peniserektion enligt beskrivningen ovan. I linje med en sådan mekanism minskades SR 141761A-inducerad peniserektion genom blockering av NMDA-receptorer och genom kväveoxidsyntashämmare, men inte genom blockering av dopamin- eller oxytocinreceptorer i den paraventrikulära kärnan, medan den förhindrades genom blockering av centrala oxytocinreceptorer av oxytocinreceptorantagonister givna icv (Melis et al., 2004a, 2006a).
3.3. Oxytocin-dopamin-interaktion i det ventrala tegmentala området
Oxytocin inducerar penile erektion när den injiceras i den kaudala delen av det ventrala tegmentala området på ett dosberoende sätt(Melis et al., 2007). Den lägsta aktiva dosen som injicerades ensidigt var 20 ng medan den högsta dosen som testades var 100 ng. Oxytocin-effekten medieras av aktiveringen av oxytocinerga receptorer, eftersom det sexuella svaret avskaffas genom den tidigare injektionen av oxytocinantagonisten d (CH2) 5Tyr (Me) 2-Orn8-vasotocin i den caudala ventrala tegmentala området. Dessa receptorer lokaliseras i cellkropparna av dopaminerga neuroner, vilka huvudsakligen kommer till kärnans accumbens skal. Följaktligen visar (1) dubbelimmunfluorescensstudier att oxytocinerga fibrer i det kaudala ventrala tegmentala området är i nära kontakt med cellkroppar av dopaminerga neuroner, varav de flesta positivt märktes för tyrosin-hydroxylas och innehållande retrogradspårämnet Fluorogold tidigare injiceras i skalet av kärnans accumbens (Melis et al., 2007) och (2) ventral tegmental area oxytocin-inducerad penil erektion sker samtidigt med en ökning i koncentrationen av extracellulär dopamin i dialysatet erhållet från skalet av kärnan accumbens (Melis et al., 2007). Oxytocininducerad penil erektion förekommer samtidigt med en ökning av kväveoxidproduktionen i det ventrala tegmentala området, varvid båda svaren antagoniseras inte bara av d (CH2) 5Tyr (Me) 2-Orn8-vasotocin och av kväveoxidsyntashämmaren S- metyl-tio-l-citrullin, men också av _-konotoxin, en spänningsberoende Ca2 + -kanalblockerare och av ODQ (1H- [1,2,4] oxadiazol [4,3-a] kinoxalin-1-en), en potent inhibitor av guanylat cyklas, alla ges i det kaudala ventrala tegmentala området före oxytocin (Succu et al., 2008). Eftersom många av de Fluorogold-märkta dopaminerga cellkropparna som kontaktats av oxytocinerga fibrer, visade sig vara positiva för tyrosinhydroxylas i det kaudala ventrala tegmentala området, märktes också positivt för kväveoxid-syntas och guanylatcyklas (Succu et al., 2008), oxytocin -inducerad penil erektion kan medieras av följande mekanism. Aktiveringen av oxytocinerga receptorer i dopaminerga cellkroppar av peptiden ökar Ca2 + -inflödet inuti cellkropparna av dopaminerga neuroner. Detta aktiverar kväveoxid-syntas, ett Ca2 + -kalmodulinberoende enzym, vilket därigenom ökar kväveoxidproduktionen. Kväveoxid aktiverar i sin tur guanylatcyklas, vilket leder till en ökad koncentration av cyklisk GMP. Cyklisk GMP aktiverar dopaminerga neuroner som skjuter ut till kärnan accumbens. Rollen av cyklisk GMP i penile erektion inducerad av oxytocin injicerad i det kaudala ventrala tegmentala området stöds även av förmågan hos 8-bromcyklisk GMP, en aktiv fosfodiesterasresistent analog av cyklisk GMP, för att inducera penile erektion när den injiceras i caudal ventral tegmental area och för att öka extracellulär dopamin i dialysatet från kärnans accumbens (Succu et al., 2008; Melis et al., 2009a). Detta står i motsats till mekanismen genom vilken kväveoxid aktiverar oxytocinerga neuroner i den paraventrikulära kärnan, som är 8-bromcyklisk GMP, som inte kan inducera penile erektion när den injiceras i denna kärna (Melis och Argiolas, 1995b) (Fig. 2). Rollen av dopamin som frisätts i nucleus accumbens i penile erektion inducerad av oxytocin injicerat i det kaudala ventrala tegmentala området stöds av förmågan hos haloperidol, en potent dopaminreceptorantagonist injicerad i nucleus accumbens, att minska oxytocinresponsen (Melis et al., 2007).När det gäller de neurala vägarna som aktiveras av dopamin i kärnan accumbens som leder till penis erektion, är dessa fortfarande okända. De tillgängliga data tyder dock på att dessa vägar aktiverar dopamin-neurotransmission i hypothalamusens paraventrikulära kärna. Följaktligen uppträder oxytocininducerad penil erektion samtidigt som en ökning av extracellulär dopamin inte bara i kärnan accumbens men också i den paraventrikulära kärnan och antagoniseras av dopaminreceptorantagonisten haloperidol injicerad i den paraventrikulära kärnan (Melis et al., 2007). enSammantaget stöder dessa resultat idén att oxytocinerga neuroner som härrör från den paraventrikulära kärnan och projicerar till det kaudala ventrala tegmentala området när de frigör oxytocin i detta område och därmed aktiverar ett NO-cykliskt GMP-signalsystem, som i sin tur aktiverar mesolimbiska dopaminerga neuroner (Melis et al., 2007, 2009a, Succu et al., 2008). Dopamin som släpps ut i kärnan accumbens aktiverar i sin tur neurala vägar som leder till aktiveringen av dopaminerga neuroner med incerto-hypotalam, vilket stimulerar paraventrikulära oxytocinerga neuroner som skjuter ut till ryggmärgsmedierande penile erektion. Samtidigt kan dopamin som frisätts i den paraventrikulära kärnan också aktivera oxytocinerga neuroner som projicerar till extrahypotalamiska hjärnområden, såsom det ventrala tegmentalområdet, hippocampusen, amygdalaen och kanske andra hjärnområden.
Som nämnts ovan, i linje med denna hypotes, ökar apomorfin injicerat i den paraventrikulära kärnan i en dos som inducerar penilektion även den extracellulära dopaminkoncentrationen i nucleus accumbens, en effekt som minskas av oxytocinreceptorantagonisten d(CH2)5Tyr(Me)2-Orn8-vasotocin injicerat i det ventrala tegmentala området (Succu et al., 2007; Melis et al., 2009a). Tillsammans kan ovanstående neurala banor utgöra en hypotetisk neural krets som involverar dopamin, oxytocin och andra neurotransmittorer (t.ex. glutaminsyra, se nedan) som inte bara påverkar sexuell prestation, utan även sexuell motivation och sexuell belöning (se avsnitt 4).
3.4. Oxytocin-glutaminsyrainteraktion i hippocampus ventral subikulum
Oxytocin inducerar penile erektion när den injiceras i ventralet, men inte i dorsaltubikulatet, på ett dosberoende sätt (Melis et al., 2009b). Det sexuella svaret medieras av stimuleringen av oxytocinreceptorer, avskaffas genom den tidigare injektionen av d (CH2) 5Tyr (Me) 2-Orn8-vasotocin ges till samma plats för oxytocin, som finns i andra hjärnområden (se ovan) . När det gäller lokaliseringen av dessa receptorer föreslår de tillgängliga data att de är lokaliserade i cellkropparna hos neuroner rika på kväveoxid-syntas.
Följaktligen visar mikrodialysstudier att oxytocininducerad erektion sker samtidigt med en ökning av kväveoxidproduktionen i det ventrala subikulumet, och denna ökning elimineras inte bara genom föregående injektion av kväveoxidsyntas-hämmaren S-metyl-tio-l-citrullin och av kväveoxidfångaren hemoglobin, utan också av d(CH2)5Tyr(Me)2-Orn8-vasotocin, alla administrerade på samma ställe som oxytocin i doser som motverkar erektion (Melis et al., 2010). Ännu viktigare är att oxytocininducerad erektion också sker samtidigt med en ökning av koncentrationen av extracellulär glutaminsyra i det ventrala subikulumet, vilken endast delvis motverkas av den icke-kompetitiva NMDA-receptorantagonisten (+)MK-801 som ges i det ventrala subikulumet (Melis et al., 2010). Tillsammans tyder dessa resultat på att nybildad kväveoxid, genom att fungera som en intercellulär budbärare, aktiverar glutaminsyra-neurotransmission som leder till peniserektion, möjligen genom neurala efferenta projektioner från det ventrala subikulumet till extrahippocampala hjärnområden. I linje med denna hypotes inducerar NMDA injicerat i det ventrala subikulumet peniserektion på ett dosberoende sätt, och denna effekt motverkas fullständigt av den tidigare injektionen på samma ställe av (+)MK-801, men inte av S-metyl-tio-l-citrullin, hemoglobin eller d(CH2)5Tyr(Me)2-Orn8-vasotocin (Melis et al., 2010). När det gäller de neurala efferenta vägarna som projicerar till extrahippocampala hjärnområden som aktiveras av exciterande aminosyror (dvs. glutaminsyra) i det ventrala subikulumet, är det troligt att dessa är glutamaterga, liksom majoriteten av de hippocampala efferenta projektionerna. För närvarande kan det bara föreslås att dessa projektioner modulerar aktiviteten hos mesolimbiska dopaminerga neuroner, vilka i sin tur modulerar aktiviteten hos incerto-hypotalamiska dopaminerga neuroner i den paraventrikulära kärnan, vilket leder till aktivering av oxytocinerga neuroner som medierar penis erektion som redan diskuterats (se ovan).
Följaktligen sker erektion inducerad av ventralt subikulumet oxytocin samtidigt med en ökning av koncentrationen av extracellulärt dopamin i skalet av nucleus accumbens, och denna ökning, liksom erektion, elimineras av d(CH2)5Tyr(Me)2-Orn8-vasotocin som ges i ventralt subikulumet före oxytocin (Melis et al., 2009b). Dessutom, eftersom oxytocin-inducerad erektion i ventralt subikulum också reduceras av (+)MK-801 injicerat i det ventrala tegmentala området, men inte i nucleus accumbens (Melis et al., 2009b) och sker samtidigt med en ökning av extracellulär glutaminsyra i det ventrala tegmentala området, men inte i nucleus accumbens, eftersom båda svaren upphävs av d(CH2)5Tyr(Me)-Orn8-vasotocin, injicerat i det ventrala subikulum före oxytocin (se Fig. 3), är det troligt att aktiveringen av mesolimbiska dopaminerga neuroner är sekundär till en ökad glutamaterg neurotransmission i det ventrala tegmentala området. Detta tyder på att en glutaminsyra-dopamin-interaktion som kontrollerar erektion existerar i det ventrala tegmentala området. Ytterligare studier är nödvändiga för att fastställa om de pro-erektila efferenta glutameterga vägarna från subikulumet till det ventrala tegmentala området är direkta eller indirekta, dvs. genom prefrontala cortex eller andra hjärnområden (se Melis et al., 2009b och referenser däri). Eftersom den paraventrikulära kärnan också tar emot glutamaterga projektioner från hippocampus (se ovan och Saphier och Feldman, 1987), och glutaminsyra aktiverar paraventrikulära oxytocinerga neuroner inklusive de som projicerar till det ventrala tegmentala området (se Argiolas och Melis, 2005 och referenser däri), och oxytocin i det ventrala tegmentala området inducerar penilektion och ökar aktiviteten hos mesolimbiska dopaminerga neuroner (se ovan), är det frestande att spekulera i att parventrikulära oxytocinerga neuroner också kan vara involverade, åtminstone delvis, i aktiveringen av mesolimbiska dopaminerga neuroner genom oxytocin injicerat i det ventrala subikulumet (se avsnitt 4).
4. Slutord
De studier som granskats ovan bekräftar och utökar tidiga fynd som visar att oxytocin hos hanråttor spelar en nyckelroll i den centrala kontrollen av penisektion på nivån av den paraventrikulära kärnan i hypotalamus och ryggmärgen. I synnerhet visar de senaste studierna att oxytocin påverkar penisektion även genom att verka i andra hjärnområden, dvs. det ventrala tegmentala området, det ventrala subikulumet och den posteromediala kortikala kärnan i amygdala.
På paraventrikulär nivå är den viktigaste nya upptäckten kanske upptäckten av uttrycket av alla dopaminreceptorer i D2-familjen (D2, D3 och D4) i cellkropparna hos oxytocinerga neuroner i den paraventrikulära kärnan (och i den supraoptiska kärnan och det mediala preoptiska området) (Baskerville och Douglas, 2008; Baskerville et al., 2009). Detta ger starkt neuroanatomiskt stöd för hypotesen att dopamin- och dopaminreceptoragonister kan aktivera direkt oxytocinerga neuroner involverade i erektil funktion och som projicerar inte bara till ryggmärgen utan även till extrahypotalamiska hjärnområden. I detta avseende är det också viktigt att upptäcka att dopaminreceptoragonistinducerad ökning av intrakavernöst tryck minskas genom blockering av oxytocinerga receptorer i den lumbosakrala ryggmärgen (Baskerville et al., 2009). Även om sådana bevis har erhållits från sövda hanråttor, bekräftar fyndet aktiveringen av en paraventrikulospinal oxytocinerg nedåtgående signalväg involverad i dopaminreceptoragonistinducerad peniserektion. Det återstår dock att fastställa om peniserektion inducerad av stimulering av dopaminreceptorer som finns i oxytocinerga cellkroppar är sekundär till aktiveringen av en specifik dopaminreceptorsubtyp av D2-familjen (D2, D3 eller D4) eller om dessa receptorsubtyper samverkar för att modulera det erektila svaret, möjligen på olika sätt beroende på det sammanhang där peniserektion sker (se Moreland et al., 2004; Enguehard-Gueiffier et al., 2006; Melis et al., 2006a,b; Löber et al., 2009; Collins et al., 2009; Depoortère et al., 2009; Baskerville et al., 2009).
En annan viktig ny upptäckt är att oxytocin inducerar penile erektion när den injiceras inte bara i den paraventrikulära kärnan eller i CA1-fältet i hippocampus utan också i det ventrala tegmentala området, det ventrala subikulatet och amygdala posteromediala kortikala kärnan. Dessa hjärnområdena testades inte i de tidigare studierna, vilket visade att oxytocin ökade spontana penisrektionsepisoder hos hanrotter, även om de mottar som lumbo-sacral ryggmärgsoxytocinerga projicer från paraventrikulärkärnan. Oxytocin hittades faktiskt i stånd att öka spontana penisrektions episoder som förekommer hos vuxna manliga råttor i frånvaro av sexuella stimuli, såsom de som härrör från närvaron av en tillgänglig eller otillgänglig mottaglig (oestrogen-progesteron-primerad) ovariektomiserad honrotta eller manipulation av könsorganen, när de injiceras in i paraventrikulärkärnan och hippocampus CA1-fält, men inte i dorsal subikulum, lateral septum, caudatkärnan, den mediala preoptiska delen, den ventromediala kärnan och den supraoptiska kärnan (Melis et al. , 1986). I alla dessa studier räknades vanligtvis penis erektion när penis framkom från penismanteln av en observatör som inte kände till de givna behandlingarna direkt under experimentet eller senare genom att observera experimentet som spelades in på en videoband med en videokameraapparat. Varje penis erektion episod varar för 0.5-1 min och är vanligtvis åtföljd av penis grooming och / eller hip flexions. Inget försök görs vanligen i dessa råttor för att fastställa effekten av sexuell erfarenhet, ålder eller om dessa råttor kan delas upp i låga eller höga responders till den pro-erektila effekten av oxytocin som injiceras i olika hjärnområden. Detta gäller även för de flesta studier av den pro-erektila effekten av andra neuropeptider och läkemedel som ökar spontana penisrektionsepisoder, inklusive dopaminagonister, excitatoriska aminosyror, ACTH-MSH, hexarelin och VGF-peptider. Den pro-erektila effekten av dessa föreningar har emellertid bekräftats upprepade gånger med hjälp av telemetriska metoder som bestämmer förekomsten av penile erektion genom ökningen av intrakarnerventrycket som uppträder spontant eller efter administration av dessa föreningar genom olika vägar, dvs systemiskt, intracerebroventrikulärt eller direkt i specifika hjärnkärnor, efter implantatet av en tryckmikrotransducer direkt in i cavernous corpora (se Bernabè et al., 1999). I det ventrala tegmentalområdet inducerar den ventrala subikulen och amygdala posteromediala kärnan också oxytocin penile erektion genom att verka på oxytocinerga receptorer. Detta leder till aktiveringen av mesolimbiska dopaminerga neuroner med ursprung i det ventrala tegmentala området och utskjutande till kärnan av kärnan accumbens, som uppmätt av ökningarna av extracellulär dopaminkoncentration i dialysatet erhållet från kärnans accumbens skal och genom reduktionen i det erektila svaret som inducerats av peptiden injicerad i dessa extra-hypotalamiska områden, som erhölls efter blockaden av dopaminerga receptorer i kärnan accumbens (se nedan). När det gäller mekanismerna som aktiveras genom stimulering av oxytocinerga receptorer i dessa hjärnområden, som leder till aktivering av mesolimbiska dopaminerga neuroner och penile erektion, är de bäst klargjorda de som förekommer i det kaudala ventrala tegmentala området. I själva verket visar här farmakologiska och immunofluorescensresultat att oxytocin-nervändar inverkar på cellkropparna av dopaminerga neuroner som skjuter ut till kärnans accumbens skal (Melis et al., 2007, 2009a, Succu et al., 2008). Många av dessa neuroner är rika på kväveoxidsyntas och i guanylatcyklas. Stimuleringen av oxytocinerga receptorer i cellkropparna hos dessa dopaminerga neuroner medför att aktiveringen av kväveoxidsyntas leder till en ökad kväveoxidproduktion. Kväveoxid aktiverar i sin tur guanylatcyklas, vilket ökar koncentrationen av cyklisk GMP, vilket leder till aktiveringen av mesolimbiska dopaminerga neuroner och frisättningen av dopamin i nukleär accumbens, mätt genom ökningen av extracellulär dopamin i dialysatet från kärnans accumbens erhållen genom intra-cerebral mikrodialys (Succu et al., 2008 ). Dopamin frigjord i kärnan accumbens aktiverar i sin tur neurala vägar som leder till penis erektion. Detta stöds av förmågan hos dopaminreceptorantagonisterna haloperidol och / eller cis-flupentixol som injiceras i kärnans accumbens för att reducera ventrikel-tegmental area-oxytocininducerad penile erektion (Succu et al., 2008). En av de pro-erektila vägarna verkar aktivera incerto-hypotalamiska dopaminerga neuroner, i synnerhet de som leder till cellkroppar av paraventrikulära oxytocinerga neuroner. I själva verket ökar oxytocin injicerat i det kaudala ventrala tegmentala området extracellulärt dopamin, inte bara i nukleär accumbens utan också i den paraventrikulära kärnan, och blockaden av dopaminreceptorer i den paraventrikulära kärnan reducerar signifikant ventrikel-tegmental area-oxytocininducerad penile erektion (Succu et al. , 2007, 2008; Melis et al., 2007, 2009a). Förekomsten av dessa kärnor accumbens dopamin-paraventricular dopamin-paraventricular oxytocin-ventral tegmental area oxytocin-dopamine links föreslås också av förmågan hos en pro-erektildos av apomorfin och av D4-receptoragonisten PD 168077 injicerad i den paraventrikulära kärnan för att öka extracellulär dopamin i kärnan av accumbens (Succu et al., 2007), respons som avskaffas av d (CH2) 5Tyr (Me) -Orn8-vasotocin ges i det ventrala tegmentala området (Melis et al., 2009a, se även nedan). Ytterligare arbete är emellertid nödvändigt för att identifiera de neurala vägarna som förbinder kärnan accumbens med det incerto-hypotalamiska dopaminerge systemet.
Mekanismen genom vilken oxytocin inducerar penile erektion och aktiverar mesolimbiska dopaminerga neuroner när de injiceras i ventral subikulum eller in i amygdalas posteromediala kärna förstås bara delvis för tillfället. På dessa områden aktiverar oxytocin också egna receptorer som leder till aktiveringen av kväveoxid-syntas, vilket ökar produktionen av kväveoxid. Kväveoxid aktiverar i sin tur okända effekta utsprång, vilket tydligen ökar glutamatergisk neurotransmission i den ventrala tegmentala delen. Glutaminsyra stimulerar sedan mesolimbiska dopaminerga neuroner som leder till penis erektion.Denna hypotes stöds huvudsakligen av förmågan hos oxytocin injicerat i ventral subikulum för att öka extracellulär glutaminsyra i det ventrala tegmentområdet (Fig. 3) och av den icke-konkurrenskraftiga NMDA-receptorantagonisten (+) MK-801 injicerad i den ventrala tegmentala delen, men inte i kärnan accumbens, för att minska penile erektion inducerad av oxytocin injicerad antingen i ventral subikulum eller in i den posteromediella kärnan av amygdalaen (Melis et al., 2009b). För närvarande finns mer detaljer tillgängliga för den ventrala subikulumoxytocininducerad penile erektion. Här verkar oxytocininducerad penile erektion sekundär till aktiveringen av oxytocinerga receptorer belägna i cellkropparna av kväveoxid-syntas-innehållande neuroner. Detta medför en ökning av produktionen av kväveoxid som aktiverar glutamatergisk neurotransmission genom att verka som en intercellulär budbärare med en mekanism liknande den som beskrivits för långsiktig potentiering (se Snyder, 1992, Southam och Garthwaite, 1993, Schuman och Madison, 2004) . I linje med denna hypotes uppträder oxytocininducerad penil erektion samtidigt med en ökning av extracellulär glutaminsyra i dialysatet från ventral subikulum och stimulering av excitatoriska aminosyrareceptorer i ventral subikulum med NMDA inducerar penile erektion. Glutaminsyra aktiverar i sin tur neurala efferenta utsprång, vilket leder till aktiveringen av mesolimbiska dopaminerga neuroner i det ventrala tegmentala området, såsom rapporterats ovan. Om dessa mekanismer är verksamma är även amygdala i posteromedialkärnan okänd för närvarande. Vidare är ytterligare studier nödvändiga för att bevisa att (1) oxytocinerga nervändar och receptorer i ventral subikulum och i amygdala posteromediala kärnor lokaliseras i cellkroppar av neuroner innehållande kväveoxid-syntas (2) om dessa neuroner i slutändan under kontroll av excitatoriska aminosyror (glutamatergiska) synapser och (3) för identifiering av signalsystemet aktiverat med kväveoxid. I detta hänseende är det anmärkningsvärt att oxytocins förmåga att öka kväveoxid-syntasaktiviteten i cellkropparna av dopaminerga neuroner i det kaudala ventrala tegmentala området och av fortfarande okända neuroner i den ventrala subikulaten och amygdala posteromediala kärnan, påminner om oxytocins förmåga att aktivera kväveoxidsyntas i cellkroppen hos oxytocinerga neuroner i den paraventrikulära kärnan (Melis et al., 1997). Emellertid, i det ventrala tegmentalområdet leder den ökade produktionen av kväveoxid i dopaminerga neurons cellkroppar till aktiveringen av dessa neuroner genom aktivering av guanylatcyklas och ökande cyklisk GMP, detta sker inte i den paraventrikulära kärnan. Följaktligen inducerar 8-bromcyklisk GMP som injiceras i den paraventrikulära kärnan inte penis erektion, medan den gör det när den injiceras i den ventrala tegmentala arean. En annan signaleringsväg som skiljer sig från det kväveoxid-cykliska GMP-systemet är då involverat vid paraventrikulär nivå vid aktiveringen av oxytocinerga neuroner som medierar penile erektion genom endogen och / eller exogen kväveoxid (Melis och Argiolas, 1995b; Melis et al., 1997) . 1). Å andra sidan verkar cyklisk GMP i det ventrala tegmentala området också spela en nyckelroll vid aktiveringen av mesolimbiska dopaminerga neuroner och i ökningen av extracellulär dopamin som uppträder i dialysatet erhållet från skalet hos kärnblocken hos hanrotter utvald för att visa eller inte visa icke-kontakt penis erektioner när de sätts i närvaro av en otillgänglig ovariektomiserad mottaglig (östrogen + progesteronbehandlad) kvinnlig råtta. Vid dessa försöksförhållanden, hos hanrottor som uppvisar icke-kontakt-penis erektioner, upptäcks en ökning av extracellulär dopaminkoncentration som förväntat, och denna ökning ökas ytterligare, även om det bara är blygsamt, genom fosfodiesterashämmare som ges in i det kaudala ventrala tegmentområdet (Sanna et al., 2009). Däremot, hos hanråttor som inte uppvisar kontaktlösa erektioner, där ingen märkbar ökning av extracellulärt dopamin i nucleus accumbens observeras, ökar den extracellulära dopaminkoncentrationen markant av fosfodiesterashämmare givet i det kaudala ventrala tegmentala området och kontaktlösa erektioner observeras (Sanna et al., 2009).
Oxytocins förmåga att injiceras i det ventrala tegmentala området, i ventral subikulum och i amygdala posteromediala kortikala kärnan, tillsammans med dopaminagonisternas insprutning i den paraventrikulära kärnan, för att inducera penile erektion och att aktivera mesolimbiska dopaminerga neuroner förtjänar lite kommentar . För det första kan mekanismer som liknar dem som nämnts ovan vara verksamma när penis erektion inträffar i fysiologiska sammanhang, såsom vid sampolymerisering (när det uppstår penile erektioner) eller vid icke-kontakta penile erektioner. Dessa erektioner är feromonförmedlade penile erektioner som kan skilja sig från de som induceras av droger eller oxytocin, vilka uppträder när sexuellt potenta manliga råttor sätts i närvaro av en otillgänglig mottaglig (ovariektomiserad östrogen + progesteronprimerad) råtta och betraktas som ett index för sexuell upphetsning (Sachs, 1997, 2007). Faktum är att även om dessa resultat inte visar att oxytocin i dessa områden spelar en roll vid penile erektion som förekommer i fysiologiska sammanhang eller efter läkemedelsadministration, lägger de ytterligare styrka till tidiga fynd som tyder på att dessa hjärnområden hör till de där oxytocin som ges centralt verkar öka inte bara spontana penis erektion episoder ses efter pro-erektilmedicin, men också för att förbättra manligt (och kvinnligt) sexuellt beteende (se Argiolas och Melis, 2004 och referenser däri). Följaktligen ökar oxytocinkoncentrationen i hippocampus hos hanrotter behandlade med en pro-erektildos av apomorfin, en klassisk dopaminagonist (Melis et al., 1990) och d (CH2) 5Tyr (Me) -Orn8-vasotocin, som blockerar oxytocin receptorer, är extremt effektiv inte bara för att försämra copulatoriskt beteende (Argiolas et al., 1987a), men också den facilitatoriska effekten av apomorfin på manlig kopulerande beteende (Argiolas et al., 1987b) hos sexuella potatisrottor, under vilka copula penile erektion inträffa. d (CH2) 5Tyr (Me) -Orn8-vasotocin är också extremt kraftfull för att reducera icke-kontakt-erektioner hos sexuella potatiska råttor när de ges i nanogrammängder i laterala ventriklerna, men inte i PVN (Melis et al., 1999a).
För det andra spelar mesolimbiska dopaminerga neuroner en nyckelroll i de motiverande och belönande egenskaperna hos naturliga förstärkande stimuli, såsom mat, vatten och sexuell aktivitet (Fibiger och Phillips, 1988; Wise och Rompre, 1989; Everitt, 1990). I synnerhet tros dopamin som frisätts från dessa neuroner mediera transpositionen av de motivationsaspekterna av naturliga stimuli till målinriktade beteenden, till exempel vid sexuell aktivitet, sökandet efter en sexuell partner och vid samlag för att uppnå belöning och tillfredsställelse (Goto och Grace, 2005). Följaktligen ökar extracellulär dopaminkoncentration i dialysat från nucleus accumbens hos sexuellt potenta hanråttor under exponering för en oåtkomlig ovariektomiserad östrogen + progesteron-primerad receptiv honråtta, och en sådan ökning var ännu högre när hanråttan fick kopulera med den receptiva honan (Pfaus och Everitt, 1995).
För det tredje stöder föreliggande resultat hypotesen att en neuralkrets förbinder den paraventrikulära kärnan med det ventrala tegmentala området direkt eller indirekt (genom den ventrala subikulära och / eller den posterjediska kortikala kärnan i amygdala) och kärnan accumbens och härifrån genom okänd vägar tillbaka igen till den paraventrikulära kärnan för att styra aktiviteten hos oxytocinerga neuroner som projicerar till ryggmärgsmediatiserande penile erektion och av oxytocinerga neuroner som skjuter ut till det ventrala tegmentalområdet, den ventrala subikulära och den posterjediska kortikala kärnan i amygdala, vilket modulerar på detta sätt aktivitet av mesolimbiska dopaminerga neuroner (Fig. 4). Denna komplexa neurala krets kan spela en roll i integrationen av neurala aktiviteter som är inblandade i kontrollen av de konsumtiva (erektil-ejakulatoriska) och förebyggande (motivativa och givande) aspekterna av manligt sexuellt beteende i fysiologiska sammanhang. I själva verket ökar den extracellulära dopaminen i kärnans accumbens (Pfaus och Everitt, 1995) och i den paraventrikulära kärnan hos sexuella potatisrottor under exponering för en otillgänglig mottaglig honrot, när icke-kontaktiga erektioner uppträder och ännu mer när sampolymeriseringen tillåts, t.ex. när det uppstår penis erektioner i samtal (Melis et al., 2003). Även om ytterligare studier är nödvändiga för att klargöra rollen av endogen oxytocin i det ventrala tegmentala området, det ventrala subikulatet och amygdalaen vid icke-kontakt-erektioner och sexuellt beteende, kan det därför vara rimligt att anta att denna hypotetiska neurala kretsen samtidigt som den bidrar till konsumtiva aspekter av sexuellt beteende, kan samtidigt samtidigt aktivera det mesolimbiska dopaminergiska systemet som ger ett neuralt substrat för att förklara de sexuella aktiviteternas givande egenskaper (Everitt, 1990, Pfaus och Everitt, 1995). I detta avseende är det anmärkningsvärt att det mesolimbiska dopaminerge systemet som aktiveras av oxytocin injicerat i det ventrala tegmentala området är detsamma aktiverat av missbruksmedel som opiater, cannabinoider, amfetamin, kokain och alkohol (Tanda et al., 1997) och att oxytocin hittades i stånd att minska tolerans och beroende av kokain, morfin, alkohol och cannabinoider (Kovacs et al., 1998, Cui et al., 2001). Sammanfattningsvis verkar det som att oxytocin frisätts inte bara i det ventrala tegmentala området utan också i den ventrala subikulen och den posterjediella kortikala kärnan i amygdalaen, kan aktivera mesolimbiska dopaminerga neuroner, vilket kan vara involverat i de aptitliga och givande effekterna av sexuell aktivitet . Aktiveringen av mesolimbiska dopaminerga neuroner kan vara direkt genom oxytocinerga receptorer i cellkroppar av mesolimbiska dopaminerga neuroner eller indirekt genom aktivering av glutaminsyra-neurotransmission i den ventrala tegmentala området.
Dopamin som släpps ut i nucleus accumbens-skalet modulerar i sin tur aktiviteten hos de incerto-hypotalamiska dopaminerga neuronerna i den paraventrikulära kärnan som orsakar antingen penile erektion (via aktivering av oxytocinerga neuroner som protesterar mot ryggmärgen) eller sexuell motivation och belöning (via aktivering av oxytocinerga neuroner som projicerar till det ventrala tegmentala området, det ventrala subikulatet eller amygdala posteromediala kortikala kärnan). Eftersom dopamin också släpps ut i kärnans accumbens-skal och i paraventrikulärkärnan när penile erektion förekommer i fysiologiska sammanhang (t.ex. icke-kontakt-erektioner och sampolymerisering) (Succu et al., 2007, Melis et al., 2003, 2007) sannolikt att centrala oxytocinerga neuroner deltar i neurala kretsar som medierar en interaktion mellan mesolimbic och det incerto-hypotalamiska dopaminerge systemet. Dessa neurala kretsar kan spela en roll, inte bara i den konsumtiva fasen av sexuellt beteende (t.ex. penile erektion och copulation), men också i sexuell motivation, sexuell upphetsning och sexuell belöning.
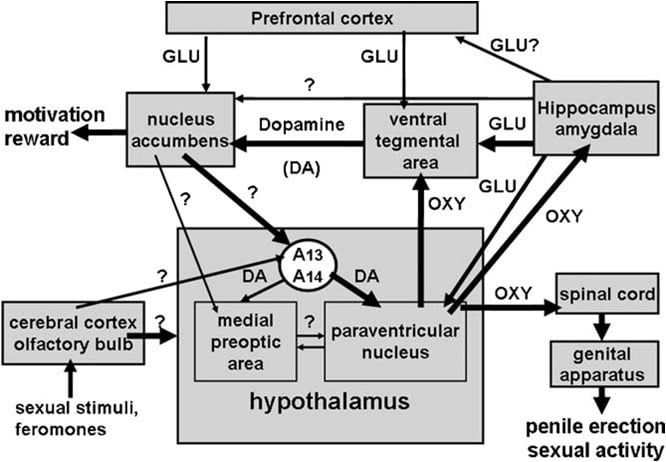
Schematisk representation av en hypotetisk neural krets som involverar oxytocin som påverkar sexuell motivation, belöning och sexuell prestation, vilket föreslås av resultaten i detta kapitel och tidigare rapporter. Oxytocinerga neuroner som har sitt ursprung i den paraventrikulära kärnan och projicerar till ryggmärgen, när de aktiveras till exempel av dopamin och glutaminsyra (men även av andra neurotransmittorer och/eller neuropeptider), underlättar penilektion och sexuell prestation genom att aktivera oxytocinerga neuroner som projicerar till ryggmärgen. Dopamin och glutaminsyra (men även neurotransmittorer och neuropeptider) i den paraventrikulära kärnan aktiverar också oxytocinerga neuroner som projicerar till det ventrala tegmentala området, och aktiverar därigenom mesolimbiska dopaminerga neuroner som projicerar till nucleus accumbens, vilket modulerar sexuell motivation och belöning. Dopamin som frisätts i nucleus accumbens (NA) aktiverar i sin tur fortfarande okända nervbanor, vilket ökar aktiviteten hos incerto-hypotalamiska dopaminerga neuroner (med ursprung i A13-A14-grupperna hos Dahlstrom och Fuxe) som bland annat påverkar oxytocinerga neuroner, inklusive de som skjuter ut i ryggmärgen, vilket leder till erektion. Denna krets kan också aktiveras av oxytocin som injiceras inte bara i det kaudala ventrala tegmentala området, utan även i det ventrala subikulumet och i amygdala, vilka också får en oxytocinerg innervation från den paraventrikulära kärnan, möjligen genom direkt eller indirekt glutamaterg efferent till det ventrala tegmentala området, vilket leder till modulering av både sexuell motivation och erektion. Slutligen kan ovanstående kretsar också aktiveras av sexuella stimuli och feromoner, eftersom extracellulär dopamin och glutaminsyra ökar i den paraventrikulära kärnan (och i det mediala preoptiska området) under feromonmedierade kontaktlösa erektioner och kopulation (för lämpliga referenser se referenslistan).
Erkännande Detta arbete stöddes delvis av ett bidrag från det italienska ministeriet för universitet och forskning till AA och MRM
Referensprojekt
Andersson, KE, 2001. Farmakologi av penis erektion. Pharmacol. Rev 53, 417-450. Argiolas, A., 1994. Kväveoxid är en central mediator i penis erektion. Neuropharmacology 33, 1339-1344. Argiolas, A., 1999. Neuropeptider och sexuellt beteende. Neurosci. Biobehav. Rev 23, 1127-1142. Argiolas, A., Gessa, GL, 1991. Centrala funktioner oxytocin. Neurosci. Biobehav. Rev 15, 217-231. Argiolas, A., Melis, MR, 1995. Neuromodulation av penile erektion: En översikt över neurotransmittorernas och neuropeptidernas roll. Prog. Neurobiol. 47, 235-255. Argiolas, A., Melis, MR, 2004. Oxytocins roll och den paraventrikulära kärnan i det sexuella beteendet hos manliga däggdjur. Physiol. Behav. 83, 309-317. Argiolas, A., Melis, MR, 2005. Central kontroll av penis erektion: roll av hypothalamus paraventrikulära kärna. Prog. Neurobiol. 76, 1-21. Argiolas, A., Collu, M., Gessa, GL, Melis, MR, Serra, G., 1988. Oxytocin-antagonisten d (CH2) 5Tyr (Me) -Orn8-vasotocin motverkar manliga samplerande beteende hos råttor. E. J. Pharmacol. 149, 389-392. Argiolas, A., Collu, M., D'Aquila, P., Gessa, GL, Melis, MR, Serra, G., 1989. Apomorfinstimulering av manlig kopulatoriskt beteende förhindras av oxytocinantagonisten d (CH2) 5Tyr (Me) -Orn8-vasotocin hos råttor. Pharmacol. Biochem. Behav. 33, 81-83. Argiolas, A., Melis, MR, Gessa, GL, 1985. Intraventrikulärt oxytocin inducerar gnagning och penis erektion hos råttor. E. J. Pharmacol. 117, 395-396. Argiolas, A., Melis, MR, Gessa, GL, 1986. Oxytocin: en extremt potent inducer av penis erektion och gäspning i hanrotter. E. J. Pharmacol. 130, 265-272. Argiolas, A., Melis, MR, Mauri, A., Gessa, GL, 1987a. Paraventrikulär kärnläsning förhindrar uppkastning och penis erektion inducerad av apomorfin och oxytocin men inte av ACTH hos råtta. Brain Res. 421, 349-352. Argiolas, A., Melis, MR, Vargiu, L., Mauri, A., Gessa, GL, 1987b. d (CH2) 5Tyr (Me) -Orn8-vasotocin, en potent oxytocinantagonist, antagoniserar penile erektion och gäspning inducerad av oxytocin och apomorfin, men inte av ACTH 1-24. E. J. Pharmacol. 134, 221-224. Argiolas, A., Melis, MR, Stancampiano, R., Gessa, GL, 1990. _ -Konotoxin förhindrar apomorfin och oxytocin-inducerad penil erektion och gäspning i hanrotter. Pharmacol. Biochem. Behav. 37, 253-257. Arletti, R., Bertolini, A., 1985. Oxytocin stimulerar lordosbeteende hos kvinnliga råttor. Neuropeptider 6, 247-255. Arletti, R., Bazzani, C., Castelli, M., Bertolini, A., 1985. Oxytocin förbättrar manliga copulatoriska prestanda hos råttor. Horm. Behav. 19, 14-20. Arletti, R., Benelli, A., Bertolini, A., 1990. Sexuellt beteende hos åldrande manrotter stimuleras av oxytocin. E. J. Pharmacol. 179, 377-382. Arletti, R., Calzà, L., Giardino, L., Benelli, A., Cavazzutti, E., Bertolini, A., 1997. Sexuell impotens är förknippad med en minskad produktion av oxytocin och en ökad produktion av opioidpeptider i hypothalamusens paraventrikulära kärna. Neurosci. Lett. 233, 65-68. Bancila, M., Giuliano, F., Rampin, O., Mailly, P., Brisorgueil, MJ, Clas, A., Verge, D., 2002. Bevis för en direkt projicering från hypotalamusens paraventrikulära kärna till förmodade serotoninerga neuroner hos kärnparagigantocellularis involverade i kontrollen av erektion hos råttor. E. J. Neurosci. 16, 1240-1249. Burnett, AL, Lowenstein, CJ, Bredt, DS, Chang, TSK, Snyder, SH, 1992. Kväveoxid: en fysiologisk mediator i penis erektion. Vetenskap 257, 401-403. Baskerville, TA, Douglas, AJ, 2008. Interaktion mellan dopamin och oxytocin vid kontroll av sexuellt beteende. Prog. Brain Res. 170, 277-289. Baskerville, TA, Allard, J., Wayman, C., Douglas, AJ, 2009. Dopamin-oxytocin interaktion vid penis erektion. E. J. Neurosci. 30, 2151-2164. Benelli, A., Bertolini, A., Poggioli, R., Cavazzutti, E., Calzà, L., Giardino, L., Arletti, R., 1995. Kväveoxid är involverad i manliga sexuella beteenden hos råttor. E. J. Pharmacol. 294, 505-510. Bernabè, J., Rampin, O., Sachs, BD, Giuliano, F., 1999. Intrakavaverns tryck vid erektion hos råttor: ett integrerat tillvägagångssätt baserat på telemetrisk inspelning. Am. J. Physiol. 276, R441-R449. Bitner, RS, Nickel, AL, Otte, S., Martino, B., Barlow, EH, Bhatia, P., Stewart, AO, Brioni, JD, Decker, MW, Moreland, RB, 2006. Dopamin D4-receptorsignalering i den råtta paraventrikulära hypotalamuskärnan: Bevis för naturlig koppling som involverar omedelbar tidig geninduktion och mitogenaktiverad proteinkinasfosforylering. Neuropharmacology 50, 521-531. Brioni, JD, Moreland, RB, Cowart, M., Hsieh, GC, Stewart, AO, Hedlund, P., Donnelly-Roberts, DL, Nakane, M., Lynch 3rd., J., Kolasa, T., Polakowski , JS, Osinski, MA, Marsh, K., Andersson, KE, Sullivan, JP, 2004. Aktivering av dopamin D4-receptorer med ABT-724 inducerar penile erektion hos råttor. Proc. Natl. Acad. Sci. USA 101, 6758-6763. Buijs, RM, 1978. Intra- och extra-hypotalamisk vasopressin och oxytocinvägar i råttan. Cellvävnad Res. 192, 423-435. Buijs, RM, Geffard, M., Pool, CW, Hoorneman, EMD, 1984. Den dopaminergiska innervationen av den supraoptiska och paraventrikulära kärnan. En ljus- och elektronmikroskopisk studie. Brain Res. 323, 65-72. Caldwell, JD, Prange, AJ, Pedersen, CA, 1986. Oxytocin underlättar sexuell mottaglighet hos östrogenbehandlade honrotter. Neuropeptider 7, 175-189. Cameron, JL, Pomerantz, SM, Layden, LM, Amico, JA, 1992. Dopaminerg stimulering av oxytocinkoncentrationer i plasma av manliga och kvinnliga apor av apomorfin och en D2-receptoragonist. J. Glin. Endocrinol. Metab. 75, 855-860. Canteras, NS, Simerly, RB, Swanson, LW, 1995. Organisering av projicer från amygdala medialkärnan: en PHAL-studie i råttan. J. Comp. Neurol. 360, 213-245. Carmichael, MS, Humbert, R., Dixen, J., Palmisano, G., Greeleaf, W., Davidson, JM, 1987. Plasmaoxytocin ökar i mänskligt sexuellt svar. J. Glin. Endocrinol. Metab. 64, 27-31. Carter, CS, 1992. Oxytocin och sexuellt beteende. Neurosci. Biobehav. Rev 16, 131-144. Carter, CS, Lederhendler, II, Kirkpatrick, B., 1997. Den interaktiva neurobiologin av anslutning, Annals of the New York Academy of Sciences, vol. 807. New York Academy of Sciences, New York. Castelli, MP, Piras, AP, Melis, T., Succu, S., Sanna, F., Melis, MR, Collu, S., Ennas, MG, Diaz, G., Mackie, K., Argiolas, A. , 2007. Cannabinoid CB1 receptorer i den paraventrikulära kärnan och central kontroll av penile erektion: immuncytokemi, autoradiografi och beteendestudier. Neurovetenskap 147, 197-206. Chen, KK, Chang, LS, 2003. Effekt av excitatoriska aminosyrareceptoragonister vid penil erektion efter administrering i paraventrikulära kärnor hos hypotalamus hos råttor. J. Urol. 62, 575-580. Chen, KK, Chan, JYH, Chang, LS, Chen, MT, Chang, SHH, 1992. Elicitation av penile erektion efter aktivering av hippocampalbildning i råttan. Neurosci. Lett. 141, 218-222. Chen, KK, Chan, JYH, Chang, LS, 1999. Dopaminerg neurotransmission vid hypotalamusens paraventrikulära kärna i central reglering av penile erektion i råtta. J. Urol. 162, 237-242. Collins, GT, Truccone, A., Haji-Abdi, F., Newman, AH, Grundt, P., Rice, KC, Mans, SM, Greedy, BM, Enguehard-Gueiffer, C., Gueiffer, A., Chen , J., Wang, S., Katz, JL, Grandy, DK, Sunahara, RK, Woods, JH, 2009. Pro-erektila effekter av dopaminD2-liknande agonister medieras av D3-receptorn hos råttor och möss. J. Pharmacol. Exp. Ther. 329, 210-217. Coolen, LM, Allard, J., Truitt, WA, McKenna, KE, 2004. Central reglering av ejakulation. Physiol. Behav. 83, 203-215. Cui, SS, Bowen, RC, Gu, GB, Hannesson, BK, Yu, PH, Zhang, X., 2001. Förebyggande av cannabinoidavdragssyndrom med litium: involvering av oxytocinerg neuronal aktivering. J. Neurosci. 21, 9867-9876. Dahlstrom, A., Fuxe, K., 1964. Bevis för existensen av monoamininnehållande neuroner i centrala nervsystemet. I. Demonstration av monoaminer i cellkropparna i hjärnstammens neuroner. Acta Physiol. Scand. 62 (Suppl. 232), 1-54. Depoortère, R., Bardin, L., Rodrigues, M., Abrial, E., Aliaga, M., Newman-Tancredi, A., 2009. Penil erektion och gäspning inducerad av dopamin D2-liknande receptoragonister hos råttor: påverkan av belastning och bidrag av dopamin D2, men inte D3- och D4-receptorer. Behav. Pharmacol. 20, 303-311. Domes, G., Heinrichs, M., Buchel, C., Braus, DF, Herpertz, SC, 2007. Oxytocin dämpar amygdala respons på emotionella ansikten oberoende av valens. Biol. Psykiatri 62, 11871190. Dominguez, J., Riolo, JV, Xu, Z., Hull, ME, 2001. Reglering genom medial amygdala av sampolymerisering och medial preoptisk dopaminfrisättning. J. Neurosci. 21, 349-355. Donaldson, ZR, Young, LJ, 2009. Oxytocin, vasopressin och socialitetens neurogenetik. Vetenskap 322, 900-904. Eaton, RG, Markowski, VF, Lumley, LA, Thompson, JT, Moses, J., Hull, EM, 1991. D2-receptorer i den paraventrikulära kärnan reglerar genitala svar och copulering hos hanrotter. Pharmacol. Biochem. Behav. 39, 177-181. Ebner, K., Bosch, OJ, Krömer, SA, Singewald, N., Neumann, ID, 2005. Frisättning av oxytocin i råttans centrala amygdala modulerar stresshantering beteende och frisättning av excitatoriska aminosyror. Neuropsykofarmakologi 30, 223-230. Enguehard-Gueiffier, C., Hübner, H., El Hakmaoui, A., Allouchi, H., Gmeiner, P., Argiolas, A., Melis, MR, Gueiffier, A., 2006. 2 - [(4-fenylpiperazin-1-yl) metyl] imidazo (di) aziner som selektiva D4-ligander. Induktion av penile erektion genom 2- [4- (2-metoxifenyl) piperazin-1-ylmetyl] imidazo [1,2-a] pyridin (PIP3EA), en potent och selektiv D4-agonist. J. Med. Chem. 49, 3938-3947. Everitt, BJ, 1990. Sexuell motivation: En neural och beteendemässig analys av de mekanismer som ligger till grund för appetitiva och copulatoriska reaktioner manliga råttor. Neurosci. Biobehav. Rev 14, 217-232. Fibiger, HC, Phillips, AG, 1988. Mesokortikolimbisk dopaminsystem och belöning. Ann. N. Y. Acad. Sci. 5, 206-215. Franska, SJ, Totterdell, S., 2003. Individuella kärnan accumbens-projiceringsneuroner mottar både basolaterala amygdala och ventrala subikulära afferenter hos råttor. Neurovetenskap 119, 19-31. 954 MR Melis, A. Argiolas / Neurovetenskap och Biobehavioral Recensioner 35 (2011) 939-955 Freund-Mercier, MJ, Richard, P., 1981. Excitatoriska effekter av intraventrikulära injektioner av oxytocin på mjölkutstötningsreflexen i råttan. Neurosci. Lett. 23, 193-198. Freund-Mercier, MJ, Richard, P., 1984. Elektrofysiologiska bevis för underlättande kontroll av oxytocinneuroner med oxytocin under amning i råtta. J. Physiol. (Lond.) 352, 447-466. Freund-Mercier, MJ, Stoeckel, ME, 1995. Somatodendritiska autoreceptorer på oxytocin-neuroner. Ivell, R., Russel, JA (Eds.), Oxytocin, Cellular and Molecular Approaches In Medicine And Research. Adv. Exp. Med. Biol., 365. Plenum Press, New York och London, s. 185-194. Freund-Mercier, MJ, Stoeckel, ME, Palacios, JM, Pazos, JM, Richard, PH, Porte, A., 1987. Farmakologiska egenskaper och anatomisk fördelning av 3H-oxytocinbindningsställen i Wistar-råtthjärnan som studeras genom autoradiografi. Neurovetenskap 20, 599-614. Giuliano, F., Rampin, O., 2000. Central kontroll av penis erektion. Neurosci. Biobehav. Rev 24, 517-533. Giuliano, F., Allard, J., 2001. Dopamin och sexuell funktion. Int. J. Impotens Res. 13 (Suppl. 3), 18-28. Giuliano, F., Rampin, O., 2004. Neural kontroll av erektion. Physiol. Behav. 83, 189-201. Giuliano, F., Bernabè, J., McKenna, KE, Longueville, F., Rampin, O., 2001. Spinalprevektiv effekt av oxytocin i bedövade råttor. Am J. Physiol. Regul. Integ. Comp. Physiol. 280, R1870-R1877. Goto, Y., Grace, AA, 2005. Dopaminerg modulering av limbisk och kortikal drivenhet av kärnan accumbens i målriktat beteende. Nat. Neurosci. 8, 805-812. Hawthorn, J., Ang, VT, Jenkins, JS, 1985. Effekter av lesioner i de hypotalamiska paraventrikulära, supraoptiska och suprachiasmatiska kärnorna på vasopressin och oxytocin i råtthjärna och ryggmärg. Brain Res. 346, 51-57. Heier, RF, Dolak, LA, Duncan, JN, Hyslop, DK, Lipton, MF, Martin, LJ, Mauragis, MA, Piercey, MF, Nichols, NF, Schreur, PJ, Smith, MW, Mån, MW, 1997. Syntes och biologiska aktiviteter av (R) -5,6-dihydro-N, N-dimetyl-4H-imidazo [4,5,1-ij] kinolin-5-amin) och dess metaboliter. J. Med. Chem. 40, 639-646. Hsieh, GC, Hollingsworth, PR, Martino, B., Chang, R., Terranova, MA, O'Neill, AB, Lynch, JJ, Moreland, RB, Donnelly-Roberts, DL, Kolasa, T., Mikusa, JP , McVey, JM, Marsh, KC, Sullivan, JP, Brioni, JD, 2004. Centrala mekanismer som reglerar penile erektion hos medvetna råttor: de dopaminerga systemen relaterade till apomorfins prooperativa effekt. J. Pharmacol. Exp. Ther. 308, 330-338. Huang, PL, Dawson, TM, Bredt, DS, Snyder, SH, Fishman, MC, 1993. Målad störning av neuronal kväveoxidsyntasgenen. Cell 75, 1273-1286. Huber, D., Veinante, P., Stoop, R., 2005. Vasopressin och oxytocin exciterar distinkta neuronpopulationer i den centrala amygdalaen. Vetenskap 308, 245-248. Hull, EM, Warner, RK, Bazzett, TJ, Eaton, RC, Thompson, JT, 1989. D2 / D1-förhållandet i det mediala preoptiska området påverkar sammansättningen av hanrotter. J. Pharmacol. Exp. Ther. 251, 422-427. Hull, EM, Du, J., Lorrain, DS, Matuszewich, L., 1995. Extracellulär dopamin i det mediala preoptiska området: konsekvenser för sexuell motivation och hormonell kontroll av kopulation. J. Neurosci. 15, 7465-7471. Hull, EM, Meisel, RL, Sachs, BD, 2002. Manligt sexuellt beteende. I: Pfaff, DW, Arnold, AP, Etgen, AM, Fahrbach, SE, Rubin, RT (Red.), Hormoner, hjärnan och beteende. Academic Press, New York, s. 3-137. Hurlemann, R., Patin, A., Onur, OA, Cohen, MX, Baumgartner, T., Metzler, S., Dziobek, I., Gallinat, J., Wagner, M., Maier, W., Kendrick, KM, 2010. Oxytocin ökar amygdala-beroende, socialt förstärkt lärande och känslomässig empati hos människor. J. Neurosci. 30, 4999-5007. Ivell, R., Russel, JA, 1995. Oxytocin: Cellulära och molekylära tillvägagångssätt inom medicin och forskning. Framsteg i experimentell medicin och biologi, vol. 395. Plenum Press, New York. Kelley, AE, Domesick, VB, 1982. Fördelningen av projiceringen från hippocampalbildningen till kärnan accumbens i råtta: en anterograde- och retrograd-pepparrotperoxidasstudie. Neurovetenskap 7, 2321-2335. Kimura, Y., Naitou, Y., Wanibuchi, F., Yamaguchi, T., 2008. 5-HT (2C) -receptoraktivering är en vanlig mekanism för prooperativa effekter av apomorfin, oxytocin och melanotan-II hos råtta. E. J. Pharmacol. 589, 157-162. Kondo, Y., Sachs, BD, Sakuma, Y., 1998. Betydelsen av den mediala amygdalaen i råttpennan ärektion framkallade av avlägsna stimuli från östliga honor. Behav. Brain Res. 91, 215-222. Kovacs, GL, Sarnyai, Z., Szabo, G., 1998. Oxytocin och missbruk: en recension. Psychoneuroendocrinology 23, 945-962. Lee, HJ, Macbeth, AH, Pagani, JH, Scott Young 3rd, W., 2009. Oxytocin: den stora hjälpmedlet för livet. Prog. Neurobiol. 88, 127-151. Lindvall, O., Bjorklund, A., Skagerberg, G., 1984. Selektiv istochemisk demonstration av dopaminterminalsystem i råttdi- och telencefalon: nytt bevis för dopaminerge innerveringar av hypotalamiska neurosekretoriska kärnor. Brain Res. 306, 19-30. Liu, YC, Salamon, JD, Sachs, BD, 1997. Försämrat sexuellt svar efter lesioner av den paraventrikulära kärnan i hypotalamus hos hanrotter. Behav. Neurosci. 111, 1361-1367. Löber, S., Tschammer, N., Hübner, H., Melis, MR, Argiolas, A., Gmeiner, P., 2009. Azulenkonstruktionen som en ny bioisostere: design av potenta dopamin D4-receptorligander som inducerar penile erektion. Chem. Med. Chem. 4, 325-328. McCleskey, EW, Fox, AP, Feldman, DH, Cruz, LJ, Olivera, BM, Tsien, RW, Yoshikami, D., 1987. _ -Konotoxin: direkt och ihållande blockad av specifika typer av kalciumkanaler i neuroner men inte muskler. Prot. Nat. Acad. Sci. USA 84, 4327-4331. McKenna, KE, 2000. Några förslag om organiseringen av centralnervesystemet kontroll av penis erektion. Neurosci. Biobehav. Rev 24, 535-540. Marson, L., McKenna, KE, 1992. En roll för 5-hydroxytryptamin i fallande inhibering av ryggradsspecifika reflexer. Exp. Brain Res. 88, 313-318. Marson, L., McKenna, KE, 1996. CNS-cellgrupper som är involverade i kontrollen av ischiocavernosus- och bulbospongiosusmusklerna: en transneuronal spårningsstudie med användning av pseudorabiesvirus. J. Comp. Neurol. 374, 161-179. Meisel, RL, Sachs, BD, 1994. Fysiologin av manligt sexuellt beteende. I: Knobil, E., Neil, J. (Eds.), Reproduktionens fysiologi, vol. 2, andra upplagan. Raven Press, New York, s. 3-96. Melin, P., Kihlstrom, JE, 1963. Influens av oxytocin på sexuellt beteende hos manliga kaniner. Endokrinologi 73, 433-435. Melis, MR, Argiolas, A., 1995a. Dopamin och sexuellt beteende. Neurosci. Biobehav. Rev 19, 19-38. Melis, MR, Argiolas, A., 1995b. Kväveoxiddonorer inducerar penisbildning och gäspning vid injektion i centrala nervsystemet hos hanrotter. E. J. Pharmacol. 294, 1-9. Melis, MR, Argiolas, A., 2003. Central oxytocinerg neurotransmission: ett läkemedelsmål för terapin av psykisk erektil dysfunktion. Curr. Drogmål 4, 55-66. Melis, MR, Argiolas, A., Gessa, GL, 1986. Oxytocin-inducerad gäspning och penis erektion: verkningsområde i hjärnan. Brain Res. 398, 259-265. Melis, MR, Argiolas, A., Gessa, GL, 1987. Apomorfininducerad gäspning och penis erektion: verkningsområde i hjärnan. Brain Res. 415, 98-104. Melis, MR, Argiolas, A., Gessa, GL, 1989a. Apomorfin ökar plasmaoxytocinnivåerna hos råtta. Neurosci. Lett. 98, 351-355. Melis, MR, Argiolas, A., Gessa, GL, 1989b. Bevis för att apomorfin inducerar penile erektion och gäspning genom att frigöra oxytocin i centrala nervsystemet. E. J. Phamacol. 164, 565-570. Melis, MR, Argiolas, A., Stancampiano, R., Gessa, GL, 1990. Effekt av apomorfin på oxytocinkoncentrationer i olika hjärnområden och plasma av hanrotter. E. J. Pharmacol. 182, 101-107. Melis, MR, Mauri, A., Argiolas, A., 1994a. Apomorfin- och oxytocin-inducerad penil erektion och gäspning i intakta och kastrerade hanrotter: effekt av sexuella steroider. Neuroendokrinologi 59, 349-354. Melis, MR, Stancampiano, R., Argiolas, A., 1994b. Penil erektion och gnagning inducerad av paraventrikulära NMDA-injektioner medieras av oxytocin. Pharmacol. Biochem. Behav. 48, 203-207. Melis, MR, Stancampiano, R., Argiolas, A., 1994c. Förebyggande av NG-nitro-l-argininmetylester av apomorfin- och oxytocininducerad penile erektion och gäspning: verkningsställe i hjärnan. Pharmacol. Biochem. Behav. 48, 799-804. Melis, MR, Succu, S., Argiolas, A., 1996. Dopaminagonister ökar kväveoxidproduktionen i hypothalamus paraventrikulära kärna: korrelation med penis erektion och gäspning. E. J. Neurosci. 8, 2056-2063. Melis, MR, Succu, S., Iannucci, U., Argiolas, A., 1997. Oxytocin ökar kväveoxidproduktionen i hypothalamus paraventrikulära kärna: korrelation med penile erektion och gäspning. Reg. Peptider 69, 105-112. Melis, MR, Succu, S., Mauri, A., Argiolas, A., 1998. Kväveoxidproduktionen ökas i den paraventrikulära kärnan hos hypothalamus hos hanrotter vid icke-kontakt penis erektioner och sampolymerisering. E. J. Neurosci. 10, 1968-1974. Melis, MR, Spano, MS, Succu, S., Argiolas, A., 1999a. Oxytocinantagonisten d (CH2) 5Tyr (Me) 2-Orn8-vasotocin minskar kontaktfria penile erektioner hos hanrotter. Neurosci. Lett. 265, 171-174. Melis, MR, Succu, S., Spano, MS, Argiolas, A., 1999b. Morfin injiceras i hypothalamusens paraventrikulära kärna förebygger ej-erektioner och försämrar sammansättningen: inblandning av kväveoxid. E. J. Neurosci. 11, 1857-1864. Melis, MR, Spano, MS, Succu, S., Argiolas, A., 2000. Effekt av excitatoriska aminosyror, dopamin och oxytocinreceptorantagonister vid icke-kontakt-penile erektioner och paraventrikulär kväveoxidproduktion hos hanrotter. Behav. Neurosci. 114, 849-857. Melis, MR, Succu, S., Mascia, MS, Cortis, L., Argiolas, A., 2003. Extracellulär dopamin ökar i den paraventrikulära kärnan hos hanrotter under sexuell aktivitet. E. J. Neurosci. 17, 1266-1272. Melis, MR, Succu, S., Mascia, MS, Argiolas, A., 2004a. Antagonism av cannabinoid CB1-receptorer i den paraventrikulära kärnan hos hanrotter inducerar penile erektion. Neurosci. Lett. 359, 17-20. Melis, MR, Succu, S., Mascia, MS, Cortis, L., Argiolas, A., 2004b. Extracellulära excitatoriska aminosyror ökar i den paraventrikulära kärnan hos hanrotter under sexuell aktivitet: huvudrollen avNMDA-receptorer i erektilfunktionen. E. J. Neurosci. 19, 2569-2575. Melis, MR, Succu, S., Mascia, MS, Argiolas, A., 2005. PD-168,077, en selektiv dopamin D4-receptoragonist, inducerar penile erektion när den injiceras i den paraventrikulära kärnan hos hanrotter. Neurosci. Lett. 379, 59-62. Melis, MR, Succu, S., Mascia, MS, Sanna, F., Melis, T., Succu, S., Castelli, MP, Argiolas, A., 2006a. SR 141716A-inducerad penile erektion hos hanrotter: involvering av paraventrikulär glutaminsyra och kväveoxid. Neuropharmacology 50, 219-228. Melis, M., Succu, S., Sanna, F., Mascia, MS, Melis, T., Enguehard-Gueiffier, C., Hubner, H., Gmenier, P., Gueiffier, A., Argiolas, A., 2006b. PIP3EA och PD168077, två selektiva dopamin D4-receptoragonister, inducerar penile erektion hos hanrotter: plats och verkningsmekanism i hjärnan. E. J. Neurosci. 24, 2021-2030. Melis, MR, Melis, T., Cocco, C., Succu, S., Sanna, F., Pillolla, G., Boi, A., Ferri, GL, Argiolas, A., 2007. Oxytocin injicerat i det ventrala tegmentala området inducerar penile erektion och ökar extracellulär dopamin i kärnan accumbens MR Melis, A. Argiolas / Neurovetenskap och Biobehavioral Recensioner 35 (2011) 939-955 955 och paraventrikulära kärnor av hypotalamus hos hanrotter. E. J. Neurosci. 26, 1026-1035. Melis, MR, Sanna, F., Succu, S., Zarone, P., Boi, A., Argiolas, A., 2009a. Oxytocins roll i de förebyggande och konsumtiva faserna av sexuellt beteende hos manliga råtta. I: Jastrow, H., Feuerbach, D. (Red.), Handbok för Oxytocin Research: Syntes, Förvaring och frisättning, Åtgärder och läkemedelsformer. Nova Publishers Inc, New York, USA, s. 109-125. Melis, MR, Succu, S., Sanna, F., Boi, A., Argiolas, A., 2009b. Oxytocin som injiceras i ventral subikulum eller den posteromediella kortikala kärnan i amygdala inducerar penile erektion och ökar extracellulär dopamin i kärnans accumbens hos hanrotter. E. J. Neurosci. 30, 1349-1357. Melis, MR, Succu, S., Cocco, C., Caboni, E., Sanna, F., Boi, A., Ferri, GL, Argiolas, A., 2010. Oxytocin inducerar penile erektion när den injiceras i ventral subikulum: kväveoxid och glutaminsyra. Neuropharmacology 58, 1153-1160. Moreland, RB, Nakane, M., Donnelly-Roberts, DL, Miller, LN, Chang, R., Uchic, ME, Terranova, MA, Gubbins, EJ, Helfrich, RJ, Namovic, MT, El-Kouhen, OF, Masters, JN, Brioni, JD, 2004. Jämförande farmakologi av human dopamin D (2) -liknande receptorstabila cellinjer kopplade till kalciumflöde genom Galpha (qo5). Biochem. Pharmacol. 68, 761-772. Moos, F., Freund-Mercier, MJ, Guerne, Y., Guerne, JM, Stoeckel, ME, Richard, P., 1984. Frigörande av oxytocin och vasopressin med magnocellulära kärnor in vitro: Specifikt underlättande effekt av oxytocin vid egen frisättning. J. Endocrinol. 102, 63-72. Murphy, MR, Seckl, JR, Burton, S., Checkley, SA, Lightman, SL, 1987. Förändringar i oxytocin och vasopressinsekretion under sexuell aktivitet hos män. J. Glin. Endocrinol. Metab. 65, 738-741. Nishimori, K., Young, LJ, Guo, Q., Wang, Z., Insel, TR, Matzuk, MM, 1996. Oxytocin krävs för omvårdnad men inte nödvändigt för födsel eller reproduktionsbeteende. Proc. Natl. Acad. Sci. USA 93, 11699-11704. Patel, S., Freedman, S., Chapman, KL, Emms, F., Fletcher, AE, Knowles, M., Marwood, R., Mccallister, G., Myers, J., Curtis, J., Kulagowski, JJ, Leeson, PD, Ridgill, M., Graham, M., Matheson, S., Rathbone, D., Watt, AP, Bristow, LJ, Rupniak, NM, Baskin, E., Lynch, JJ, Ragan, Cl , 1997. Biologisk profil för L 745,870, en selektiv antagonist med hög affinitet för dopamin D4-receptorn. J. Pharmacol. Exp. Ther. 283, 636-647. Pedersen, CA, Caldwell, JD, Jirikowski, GF, Insel, TR, 1992. Oxytocin i moder-, sexuella och sociala beteenden, Annals of the New York Academy of Sciences, vol. 652. New York Academy of Sciences, New York. Petrovic, P., Kalisch, R., Sångare, T., Dolan, RJ, 2008. Oxytocin dämpar affektiva utvärderingar av konditionerade ansikten och amygdala aktivitet. J. Neurosci. 28, 6607-6615. Pfaus, JG, Everitt, BJ, 1995. Den psykofarmakologi av sexuellt beteende. I: Knobil, FE, Kupfer, DJ (Eds.), Psychopharmacology: den fjärde generationen av framsteg. Raven Press, New York, s. 742-758. Rajfer, J., Aronson, WJ, Bush, PA, Dorey, FJ, Ignarro, LJ, 1992. Kväveoxid som medlare av avslappning av corpus cavernosum som svar på icke-adrenerg, icke-kolinerg neurotransmission. N. Engl. J. Med. 326, 90-94. Roeling, TAP, Van Erp, AMM, Meelis, W., Kruk, MR, Veening, JG, 1991. Beteendeeffekter av NMDA injicerad i råttans hypotalamiska paraventrikulära kärna. Brain Res. 550, 220-224. Sachs, BD, 1997. Erection framkallade hos hanrotter av luftburna dofter från östliga honor. Physiol. Behav. 62, 921-924. Sachs, BD, 2000. Kontextuella förhållningssätt till fysiologi och klassificering av erektil funktion, erektil dysfunktion och sexuell upphetsning. Neurosci. Biobehav. Rev 24, 541-560. Sachs, BD, 2007. En kontextuell definition av manlig sexuell upphetsning. Horm. Behav. 51, 569-578. Sanchez, F., Alonso, JR, Arevalo, R., Blanco, E., Aijon, J., Vazquez, R., 1994. Sameksistens av NADPH-diforas med vasopressin och oxytocin i rottens hypotalamiska magnocellulära neurosekretoriska kärnor. Cellvävnad Res. 276, 31-34. Sanna, F., Succu, S., Boi, A., Melis, MR, Argiolas, A., 2009. Fosfodiesteras typ 5-hämmare underlättar ej-kontakt-erektioner hos hanrotter: verkningsställe i hjärnan och verkningsmekanism. J. Sex. Med. 6, 2680-2689. Saphier, D., Feldman, S., 1987. Effekter av septal och hippocampala stimuli på paraventrikulära nukleärneuroner. Neurovetenskap 20, 749-755. Sato-Suzuki, I., Kita, I., Oguri, M., Arita, H., 1998. Stereotypa gawningsresponser induceras genom elektrisk och kemisk stimulering av ryggradens paraventrikulära kärna. J. Neurophysiol. 80, 2765-2775. Schuman, EM, Madison, DV, 1994. Kväveoxid och synaptisk funktion. Ann. Rev Neurosci. 17, 153-183. Snyder, SH, 1992. Kväveoxid: först i en ny klass av neurotransmittorer? Vetenskap 254, 494-496. Sofroniew, MV, 1983. Vasopressin och oxytocin i däggdjurshjärnan och ryggmärgen. Trender Neurosci. 6, 467-472. Sokoloff, P., Schwartz, JC, 1995. Nya dopaminreceptorer ett halvt decennium senare. Trends Pharmacol. Sci. 16, 270-275. Southam, E., Garthwaite, J., 1993. Den kväveoxid-cykliska GMP-signalvägen i råtthjärnan. Neuropharmacology 32, 1267-1277. Stancampiano, R., Melis, MR, Argiolas, A., 1994. Penil erektion och gäspning inducerad av 5-HT1c-agonister hos hanrotter: samband med dopaminerg och oxytocinerg överföring. E. J. Pharmacol. 261, 149-155. Succu, S., Mascia, MS, Sanna, F., Melis, T., Argiolas, A., Melis, MR, 2006. Cannabinoid CB1-receptorantagonisten SR 141716A inducerar penile erektion genom att öka extracellulär glutaminsyra i den paraventrikulära kärnan hos hanrotter. Behav. Brain Res. 169, 274-281. Succu, S., Sanna, F., Melis, T., Boi, A., Argiolas, A., Melis, MR, 2007. Stimulering av dopaminreceptorer i den paraventrikulära kärnan hos hypothalamus hos hanrotter inducerar penile erektion och ökar extracellulär dopamin i kärnan accumbens: involvering av central oxytocin. Neuropharmacology 52, 1034-1043. Succu, S., Sanna, F., Cocco, C., Melis, T., Boi, A., Ferri, GL, Argiolas, A., Melis, MR, 2008. Oxytocin inducerar penile erektion när den injiceras i det ventrala tegmentala området hos hanrotter: kväveoxidens roll och cyklisk GMP. E. J. Neurosci. 28, 813-821. Tanda, G., Pontieri, FE, Di Chiara, G., 1997. Cannabinoider och heroinaktivering av mesolimbisk dopaminöverföring med en gemensam mu1-opioidreceptormekanism. Vetenskap 276, 2048-2050. Tang, Y., Rampin, O., Calas, A., Facchinetti, P., Giuliano, F., 1998. Oxytocinerg och serotoninergisk innervering av identifierade lumbosakralkärnor som kontrollerar penile erektion i hanråttan. Neurovetenskap 82, 241-254. Theodosis, DT, 1985. Oxytocin-immunoreaktiva terminaler synaps på oxytocin-neuroner i de supraoptiska kärnorna. Nature (London) 313, 682-684. Tindall, JS, 1974. Stimuli som orsakar frisättning av oxytocin. I: Geiger, SR, Knobil, E., Sawyer, WH, Greef, R., Astwood, EB (Red.), Handbook of Physiology. Sekt. 7, endokrinologi, vol. IV. American Physiology Society, Washington DC, s. 257-267. Torres, G., Lee, S., Rivier, C., 1993. Ontogeni av råtthypotalamins kväveoxidsyntas och kolokalisering med neuropeptider. Mol. Cell. Neurosci. 4, 155-163. Uhl-Bronner, S., Waltisperger, E., Martinez-Lorenzana, G., Condes, LM, Freund-Mercier, MJ, 2005. Sexuellt dimorf uttryck av oxytocinbindningsställen i ryggraden och ryggmärgen hos råttan. Neurovetenskap 135, 147-154. Vaccari, C., Lolait, SJ, Ostrowski, NL, 1998. Jämförande fördelning av vasopressin V1b och oxytocinreceptor messenger ribonukleinsyror i hjärnan. Endokrinologi 139, 5015-5033. Van Den Pol, A., 1991. Glutamat och aspartatimmunoreaktivitet i hypotalamiska presynaptiska axoner. J. Neurosci. 11, 2087-2101. Veronneau-Longueville, F., Rampin, O., Freund-Mercier, MJ, Tang, Y., Calas, A., Marson, L., McKenna, KE, Stoeckel, ME, Benoit, G., Giuliano, F. , 1999. Oxytocinergisk innervation av autonoma kärnor som styr penis erektion i råtta. Neurovetenskap 93, 1437-1447. Vincent, SR, Kimura, H., 1992. Histokemisk kartläggning av kväveoxidsyntas i råtthjärnan. Neurovetenskap 46, 755-784. Wagner, CK, Clemens, LG, 1993. Neurofysininnehållande vägen från hypotalamusens paraventrikulära kärna till en könsmässig dimorf motorkärna i ryggmärgen. J. Comp. Neurol. 336, 106-116. Winslow, JT, Insel, TR, 1991. Social status i par av manliga ekorrar bestämmer beteendemässigt svar på central oxytocinadministrering. J. Neurosci. 11, 2032-2038. Wise, RA, Rompre, P.-P., 1989. Hjärndopamin och belöning. Ann. Rev Psychol. 40, 191-225. Witt, DM, Insel, TR, 1994. Mäns sexuella beteende aktiverar c-fos-liknande protein i oxytocin-neuroner i hypothalamusens paraventrikulära kärna. J. Neuroendocrinol. 6, 13-18. Witter, MP, 2006. Anslutningar av råtta subikulum: topografi i förhållande till kolumnar och laminär organisation. Behav Brain Res. 174, 251-264. Woodruff, GN, Foster, AC, Gill, R., Kemp, JA, Wong, EH, Iversen, LL, 1987. Samspelet mellan MK-801 och receptorer för N-metyl-d-aspartat: funktionella konsekvenser. Neuropharmacology 26, 903-909. Yamashita, H., Shigeru, O., Inenaga, K., Kasai, M., Uesugi, S., Kannan, H., Kaneko, T., 1987. Oxytocin exciterar överväldigande förmodade oxytocin-neuroner i den supraoptiska kärnan i vitro. Brain Res. 416, 364-368. Yells, DP, Hendricks, SE, Prendergast, MA, 1992. Lesioner av kärnan paragigantocellularis: effekter på parning beteende hos hanrotter. Brain Res. 596, 73-79. Young, WS, Shepard, E., Amico, J., Hennighausen, L., LaMarca, ME, McKinney, C., Ginns, EI, 1996. Brist i musoxytocin hindrar utstötning av mjölken, men inte fertilitet eller födsel. J. Neuroendocrinol. 8, 847-854. Zahran, AR, Vachon, P., Courtois, F., Carrier, S., 2000. Ökningar i intracavernöst peniltryck efter injektioner av excitatoriska aminosyrareceptoragonister i den hypotalamiska paraventrikulära kärnan hos bedövade råttor. J. Urol. 164, 1793-1797.