หมายเหตุ: บทวิจารณ์นี้จัดทำโดย นอร่า โวลคอฟ หัวหน้าสถาบันวิจัยยาเสพติดแห่งชาติ และทีมงานของเธอ บทวิจารณ์นี้ระบุถึงความผิดปกติทางระบบประสาทชีววิทยาหลัก 3 ประการที่เกี่ยวข้องกับการเสพติดทุกประเภท กล่าวโดยสรุปคือ: ก) การลดความไวต่อสิ่งเร้า : การตอบสนองต่อความสุขที่ลดลงเนื่องจากการส่งสัญญาณโดปามีนลดลงข) การเพิ่มความ ไวต่อสิ่ง เร้า: การตอบสนองของโดปามีนที่เพิ่มขึ้นต่อสิ่งกระตุ้นหรือความเครียดที่นำไปสู่การเสพติด และค) ภาวะสมองส่วนหน้าทำงานบกพร่อง : วงจรการควบคุมตนเองอ่อนแอลงเนื่องจากปริมาตรและการทำงานของสมองส่วนหน้าลดลง การเปลี่ยนแปลงของสมองเหล่านี้ได้รับการอธิบายโดยสมาคมการแพทย์ด้านการเสพติดแห่งอเมริกา (ASAM) ในคำจำกัดความใหม่ของการเสพติดที่เผยแพร่ในเดือนสิงหาคม พ.ศ. 2011 เช่นกัน
Volkow ND, วัง GJ, ฟาวเลอร์ JS, Tomasi D, Telang F, Baler R. Bioessays 2010 ก.ย. 32 (9): 748-55
สถาบันยาเสพติดแห่งชาติ, NIH, Bethesda, MD 20892, สหรัฐอเมริกา
นามธรรม
จากการค้นพบการถ่ายภาพสมองเรานำเสนอแบบจำลองตามการติดยาเสพติดที่ปรากฏเป็นความไม่สมดุลในการประมวลผลข้อมูลและการรวมเข้าด้วยกันระหว่างวงจรและฟังก์ชั่นต่างๆของสมอง
ความผิดปกติสะท้อนให้เห็นถึง:
(a) ความไวที่ลดลงของวงจรรางวัล
(b) เพิ่มความไวของวงจรหน่วยความจำต่อความคาดหวังของยาและตัวชี้นำการทำปฏิกิริยากับความเครียดและอารมณ์เชิงลบ
(c) และวงจรควบคุมที่อ่อนแอ
แม้ว่าการทดลองครั้งแรกกับยาเสพติดเป็นการละเมิดเป็นส่วนใหญ่เป็นพฤติกรรมโดยสมัครใจการใช้ยาอย่างต่อเนื่องในที่สุดก็สามารถทำให้วงจรประสาทในสมองที่เกี่ยวข้องกับเจตจำนงเสรีเปลี่ยนการใช้ยาให้เป็นพฤติกรรมบังคับโดยอัตโนมัติ ความสามารถของยาเสพติดในการเลือกใช้สารสื่อประสาทที่ส่งสัญญาณระหว่างเซลล์ประสาท (รวมถึงโดปามีน, กลูตาเมตและ GABA) ปรับเปลี่ยนการทำงานของวงจรประสาทต่าง ๆ ซึ่งเริ่มสะดุดลงในขั้นตอนต่าง ๆ ของวิถีการติดยาเสพติด เมื่อได้รับยาตัวชี้นำของยาหรือความเครียดส่งผลให้เกิดการกระตุ้นสมาธิ / แรงขับซึ่งทำให้เกิดการบริโภคยาเสพติดซึ่งเป็นลักษณะเฉพาะของการติดยา
บทนำ
25 ปีสุดท้ายของการวิจัยทางประสาทวิทยาได้สร้างหลักฐานว่าการติดยาเสพติดเป็นโรคของสมองซึ่งเป็นข้อโต้แย้งที่ทรงพลังในการรักษามาตรฐานการรักษาพยาบาลแบบเดียวกันให้กับบุคคลที่ติดยาเสพติดเหมือนกับคนทั่วไปที่เป็นโรคอื่น ๆ โรคเบาหวาน. อันที่จริงการวิจัยเกี่ยวกับการเสพติดได้เริ่มเปิดเผยลำดับของเหตุการณ์และผลสืบเนื่องที่ยาวนานซึ่งอาจเป็นผลมาจากการใช้สารเสพติดอย่างต่อเนื่อง การศึกษาเหล่านี้แสดงให้เห็นว่าการใช้ยาซ้ำ ๆ สามารถกำหนดเป้าหมายโมเลกุลโมเลกุลและวงจรสมองได้อย่างไรและในที่สุดก็จะขัดขวางกระบวนการสั่งซื้อที่สูงขึ้นซึ่งส่งผลต่ออารมณ์ความรู้ความเข้าใจและพฤติกรรม เราได้เรียนรู้ว่าการเสพติดนั้นมีลักษณะเป็นวัฏจักรที่เพิ่มขึ้นของความผิดปกติในสมอง โดยทั่วไปแล้วการด้อยค่าจะเริ่มขึ้นในพื้นที่ดั้งเดิมที่มีวิวัฒนาการมากกว่าของสมองที่ประมวลผลการให้รางวัลและจากนั้นก็ย้ายไปยังพื้นที่อื่น ๆ ที่รับผิดชอบในการทำงานของการรับรู้ที่ซับซ้อนมากขึ้น ดังนั้นนอกเหนือจากการให้รางวัลบุคคลที่ติดยาเสพติดสามารถประสบกับการหยุดชะงักอย่างรุนแรงในการเรียนรู้ (ความจำการปรับสภาพความเคยชิน) การทำงานของผู้บริหาร (การยับยั้งแรงกระตุ้นการตัดสินใจการทำให้พอใจล่าช้า) การรับรู้ทางปัญญา ฟังก์ชั่น.
การวาดภาพส่วนใหญ่มาจากผลการศึกษาการถ่ายภาพสมองที่ใช้เอกซเรย์ปล่อยโพซิตรอน (PET) เราแนะนำวงจรสมองหลักที่ได้รับผลกระทบจากการใช้ยาเสพติดเรื้อรังและนำเสนอรูปแบบที่สอดคล้องกันตามที่ติดยาเสพติดเป็นผลสุทธิ การประมวลผลข้อมูลที่ไม่สมดุลในและระหว่างวงจรเหล่านี้ ความเข้าใจอย่างถี่ถ้วนเกี่ยวกับกระบวนการทางสมองแบบปรับตัวได้ (neuroplastic) เหล่านี้อย่างค่อยเป็นค่อยไปและปัจจัยเสี่ยงด้านชีวภาพและสิ่งแวดล้อมที่มีอิทธิพลต่อโอกาสของพวกเขานั้นเป็นสิ่งสำคัญสำหรับการพัฒนาวิธีการป้องกันและรักษาที่มีประสิทธิภาพมากขึ้น
ต้องใช้การโดปามีนสูง แต่สั้น ๆ
การเสพติดเป็นโรคของระบบรางวัลในสมองเป็นอันดับแรกและสำคัญที่สุด ระบบนี้ใช้สารสื่อประสาทโดปามีน (DA) เป็นสกุลเงินหลักในการส่งต่อข้อมูล DA ในสมองมีบทบาทสำคัญในการประมวลผลข้อมูลเกี่ยวกับความโดดเด่น [ 1 , 2 ] ซึ่งเป็นหัวใจสำคัญของความสามารถในการควบคุมหรือมีอิทธิพลต่อรางวัล [ 3 , 4 ] ความคาดหวังของรางวัล [ 5 ] แรงจูงใจ อารมณ์ และความรู้สึกพึงพอใจ การปล่อย DA ชั่วคราวในสมองส่วนเวนทรัลสไตรอาตัมเป็นเหตุการณ์ที่จำเป็น แต่ไม่เพียงพอในกระบวนการที่ซับซ้อนซึ่งก่อให้เกิดความรู้สึกของรางวัล การเพิ่มขึ้นของ DA ดูเหมือนจะมีความสัมพันธ์เชิงบวกกับความเข้มข้นของ "ความรู้สึกเคลิบเคลิ้ม" ที่ผู้ถูกทดลองประสบ การตอบสนองแบบมีเงื่อนไขจะเกิดขึ้นก็ต่อเมื่อ DA ถูกปล่อยออกมาซ้ำๆ ในรูปแบบของการพุ่งขึ้นอย่างรวดเร็วและชั่วคราว เพื่อตอบสนองต่อยาหรือสัญญาณที่เกี่ยวข้องกับยา
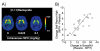
ที่น่าสนใจคือ ยาเสพติดทุกชนิดไม่ว่าจะทางตรงหรือทางอ้อม ทำงานโดยกระตุ้นให้เกิดการเพิ่มขึ้นอย่างมากแต่ชั่วคราวของ DA นอกเซลล์ในบริเวณสำคัญของระบบรางวัล (ลิมบิก) [ 6 , 7 ] โดยเฉพาะอย่างยิ่งในนิวเคลียสแอคคัมเบนส์ (Nac) ซึ่งตั้งอยู่ในเวนทรัลสไตรอาตัม การเพิ่มขึ้นอย่างฉับพลันของ DA ดังกล่าวคล้ายคลึง และในบางกรณีก็มากกว่าการเพิ่มขึ้นทางสรีรวิทยาที่เกิดจากสิ่งเร้าที่น่าพึงพอใจตามธรรมชาติ (โดยทั่วไปเรียกว่าตัวเสริมแรงหรือรางวัลตามธรรมชาติ) ดังที่เราคาดไว้ การศึกษาภาพสมองของมนุษย์โดยใช้การตรวจเอกซเรย์คอมพิวเตอร์แบบโพซิตรอน (PET) ได้แสดงให้เห็นอย่างชัดเจนว่าการเพิ่มขึ้นของ DA ที่เกิดจากยาประเภทต่างๆ ( เช่นสารกระตุ้น ( รูปที่ 1A ) [ 8 , 9 ] นิโคติน [ 10 ] และแอลกอฮอล์ [ 11 ]) ภายในเวนทรัลสไตรอาตัมนั้นเชื่อมโยงกับประสบการณ์ความรู้สึกเคลิบเคลิ้ม (หรือความรู้สึกมึนเมา) ในระหว่างการมึนเมา [ 12 , 13 , 14 ] เนื่องจากสามารถทำการศึกษา PET ในมนุษย์ที่ตื่นอยู่ได้ จึงเป็นไปได้ที่จะพล็อตความสัมพันธ์ระหว่างรายงานความรู้สึกเกี่ยวกับผลกระทบของยาและการเปลี่ยนแปลงสัมพัทธ์ของระดับ DA การศึกษาส่วนใหญ่รายงานว่าผู้ที่แสดงการเพิ่มขึ้นของ DA มากที่สุดหลังจากการได้รับยา [แอมเฟตามีน นิโคติน แอลกอฮอล์ เมทิลเฟนิเดต (MPH)] ยังรายงานความรู้สึกมึนเมาหรือความรู้สึกเคลิบเคลิ้มที่รุนแรงที่สุดด้วย ( รูปที่ 1B )
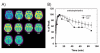
การศึกษาในสัตว์และมนุษย์แสดงให้เห็นว่า ความเร็วที่ยาเข้าสู่สมอง ออกฤทธิ์ และออกจากสมอง ( เช่นโปรไฟล์ทางเภสัชจลนศาสตร์) มีบทบาทสำคัญในการกำหนดผลกระทบที่ทำให้เกิดการเสพติด แท้จริงแล้ว ยาเสพติดทุกชนิดที่มีการวัดเภสัชจลนศาสตร์ในสมองด้วย PET (โคเคน, MPH, เมทแอมเฟตามีน และนิโคติน) แสดงโปรไฟล์เดียวกันเมื่อให้ยาทางหลอดเลือดดำ กล่าวคือระดับสูงสุดในสมองของมนุษย์จะถึงภายใน 10 นาที ( รูปที่ 2A ) และการดูดซึมอย่างรวดเร็วนี้เกี่ยวข้องกับ "ความรู้สึกเคลิบเคลิ้ม" ( รูปที่ 2B ) จากความสัมพันธ์นี้ จึงสรุปได้ว่า การทำให้แน่ใจว่ายาเสพติดเข้าสู่สมองช้าที่สุดเท่าที่จะเป็นไปได้ น่าจะเป็นวิธีที่มีประสิทธิภาพในการลดศักยภาพในการทำให้เกิดการเสพติด และลดความเสี่ยงในการเสพติดลง เราได้ออกแบบการทดลองเพื่อทดสอบสมมติฐานนี้โดยเฉพาะด้วยยา MPH ซึ่งเป็นยากระตุ้นเช่นเดียวกับโคเคน ซึ่งเพิ่ม DA โดยการชะลอการขนส่งกลับเข้าไปในเซลล์ประสาทก่อนซินแนปส์ ( เช่นโดยการปิดกั้นตัวขนส่ง DA) จึงทำให้สัญญาณ DA ขยายใหญ่ขึ้น อันที่จริง เราพบว่า ในขณะที่การให้ MPH ทางหลอดเลือดดำมักทำให้เกิดความรู้สึกเคลิบเคลิ้ม แต่การให้ MPH ทางปาก ซึ่งเพิ่ม DA ในสไตรอาตัมเช่นกัน [ 15 ] แต่มีเภสัชจลนศาสตร์ที่ช้ากว่า 6 ถึง 12 เท่า มักจะไม่ถูกมองว่าเป็นการเสริมแรง [ 16 , 17 ] ดังนั้น ความล้มเหลวของ MPH ทางปาก หรือแอมเฟตามีน [ 18 ] ในการทำให้เกิดความรู้สึกเคลิบเคลิ้มนั้น น่าจะเป็นผลมาจากการดูดซึมเข้าสู่สมองที่ช้า [ 19 ] ดังนั้น จึงเป็นเรื่องสมเหตุสมผลที่จะเสนอว่ามีความสัมพันธ์อย่างใกล้ชิดระหว่างอัตราที่ยาเสพติดเข้าสู่สมอง ซึ่งเป็นตัวกำหนดความเร็วที่ DA เพิ่มขึ้นใน ventral striatum และผลเสริมแรงของยาเสพติดนั้น [ 20 , 21 , 22 ] กล่าวอีกนัยหนึ่งคือ เพื่อให้ยาเสพติดมีผลเสริมแรง ยาเสพติดนั้นจะต้องเพิ่ม DA อย่างฉับพลัน ทำไมจึงเป็นเช่นนั้น?
โดยพิจารณาจากขนาดและระยะเวลาของการยิงของเซลล์ประสาท การส่งสัญญาณ DA สามารถมีได้สองรูปแบบพื้นฐาน คือ แบบเฟสิกหรือแบบโทนิก การส่งสัญญาณแบบเฟสิกมีลักษณะเฉพาะคือแอมพลิจูดสูงและการยิงเป็นช่วงสั้นๆ ในขณะที่การส่งสัญญาณแบบโทนิกมักมีแอมพลิจูดต่ำและมีระยะเวลาที่ยาวนานกว่าหรือต่อเนื่องกว่า ความแตกต่างนี้มีความสำคัญเนื่องจากพบว่าการส่งสัญญาณ DA แบบเฟสิกมีความจำเป็นสำหรับยาเสพติดในการกระตุ้น “การตอบสนองแบบมีเงื่อนไข” ซึ่งเป็นหนึ่งในการปรับตัวทางประสาทเบื้องต้นที่เกิดขึ้นหลังจากการสัมผัสกับสิ่งเร้าที่เสริมแรง (รวมถึงยาเสพติด) หนึ่งในลักษณะเด่นที่เชื่อมโยงการส่งสัญญาณแบบเฟสิกกับการปรับเงื่อนไขคือการมีส่วนร่วมของตัวรับ D2R และกลูตาเมตn -methyl- d -aspartic acid (NMDA) [ 23 ] ในทางกลับกัน การส่งสัญญาณ DA แบบโทนิกมีบทบาทในการปรับการทำงานของหน่วยความจำและกระบวนการบริหารอื่นๆ ลักษณะบางประการที่ทำให้โหมดการส่งสัญญาณนี้แตกต่างจากแบบเฟสิกคือการทำงานส่วนใหญ่ผ่านตัวรับ DA ที่มีความสัมพันธ์ต่ำกว่า (ตัวรับ DA D1) อย่างไรก็ตาม แม้จะมีกลไกที่แตกต่างกัน การได้รับยาเป็นเวลานาน (และการเปลี่ยนแปลงในการส่งสัญญาณ DA แบบโทนิกผ่านตัวรับเหล่านี้) ก็มีส่วนเกี่ยวข้องกับการเปลี่ยนแปลงของนิวโรพลาสติกซึ่งในที่สุดส่งผลให้เกิดการปรับสภาพ [ 25 ] ผ่านการดัดแปลงตัวรับกลูตาเมต NMDA และอัลฟา-อะมิโน-3-ไฮดรอกซิล-5-เมทิล-4-ไอโซซาโซน-โพรพิโอเนต (AMPA) [ 24 ]
หลักฐานบ่งชี้ว่าการเพิ่มขึ้นของ DA อย่างฉับพลันที่เกิดจากยาเลียนแบบการทำงานของเซลล์ DA แบบเป็นช่วงๆ ซึ่งช่วยอธิบายว่าทำไมการใช้สารเสพติดเรื้อรังจึงก่อให้เกิดการตอบสนองแบบมีเงื่อนไขที่ทรงพลังต่อตัวยาเอง ความคาดหวัง และสัญญาณต่างๆ มากมาย (ผู้คน สิ่งของ และสถานที่) ที่เกี่ยวข้องกับการใช้ยา อย่างไรก็ตาม แม้ว่าผลกระทบที่เสริมแรงอย่างเฉียบพลันของยาเสพติดที่ขึ้นอยู่กับการเพิ่มขึ้นของ DA อย่างรวดเร็วนั้นอาจ “จำเป็น” ต่อการพัฒนาการเสพติด แต่ก็ชัดเจนว่าไม่ “เพียงพอ” การได้รับยาซ้ำๆ ทำให้เกิดการเปลี่ยนแปลงในการทำงานของ DA ในสมองซึ่งต้องใช้เวลาในการพัฒนา เนื่องจากเป็นผลมาจากการปรับตัวทางประสาทรองในระบบสารสื่อประสาทอื่นๆ ( เช่นกลูตาเมต [ 26 ] และอาจรวมถึงกรดแกมมาอะมิโนบิวทิริก (GABA)) ซึ่งในที่สุดจะส่งผลต่อวงจรสมองเพิ่มเติมที่ถูกปรับเปลี่ยนโดย DA วงจรเหล่านี้เป็นจุดสนใจของส่วนถัดไป
การใช้ยาเสพติดอย่างเรื้อรังจะทำให้ผู้รับสารโดปามีนและการผลิตโดปามีนลดลง: "สูง" ทื่อ
ข้อเท็จจริงที่ว่าการใช้ยาต้องเรื้อรังก่อนที่การเสพติดจะฝังรากลึก เป็นข้อบ่งชี้ที่ชัดเจนว่าโรคนี้ขึ้นอยู่กับการรบกวนซ้ำๆ ของระบบรางวัลในบุคคลที่อ่อนแอ การรบกวนเหล่านี้ในที่สุดอาจนำไปสู่การปรับตัวของระบบประสาทในวงจรอื่นๆ อีกมากมาย (แรงจูงใจ/แรงขับ การควบคุมการยับยั้ง/การทำงานของผู้บริหาร และความจำ/การปรับสภาพ) ซึ่งได้รับการปรับเปลี่ยนโดย DA เช่นกัน [ 27 ] ในบรรดาการปรับตัวของระบบประสาทที่ได้รับการรายงานอย่างสม่ำเสมอในผู้ที่ติดยาเสพติด ได้แก่ การลดลงอย่างมีนัยสำคัญของระดับตัวรับ D2R (ความสัมพันธ์สูง) และปริมาณของ DA ที่ปล่อยออกมาจากเซลล์ DA [ 28 ] ( รูปที่ 3 ) ที่สำคัญคือ การขาดดุลเหล่านี้เกี่ยวข้องกับกิจกรรมการเผาผลาญในระดับภูมิภาคที่ต่ำกว่าในบริเวณของเยื่อหุ้มสมองส่วนหน้า (PFC) ซึ่งมีความสำคัญต่อประสิทธิภาพการทำงานของผู้บริหารอย่างเหมาะสม ( เช่นไจรัสซิงกูเลตด้านหน้า (CG) และเยื่อหุ้มสมองส่วนหน้าด้านวงโคจร (OFC)) ( รูปที่ 4A ) การสังเกตนี้ทำให้เราตั้งสมมติฐานว่านี่อาจเป็นหนึ่งในกลไกที่เชื่อมโยงการรบกวนการส่งสัญญาณ DA ที่เกิดจากยาเข้ากับการใช้ยาอย่างต่อเนื่องและการขาดการควบคุมการรับประทานยาซึ่งเป็นลักษณะเฉพาะของการเสพติด [ 29 ] นอกจากนี้ ภาวะ hypodopaminergic ที่เกิดขึ้นจะอธิบายถึงความไวที่ลดลงของบุคคลที่ติดยาต่อรางวัลตามธรรมชาติ (เช่น อาหาร เพศ ฯลฯ) และการใช้ยาอย่างต่อเนื่องเพื่อชดเชยความบกพร่องนี้ชั่วคราว [ 30 ] ผลที่ตามมาที่สำคัญของความรู้นี้คือ การแก้ไขความบกพร่องเหล่านี้ (โดยการเพิ่มระดับ D2R ใน striatum และเพิ่มการปล่อย DA ใน striatum และบริเวณ prefrontal) อาจเป็นกลยุทธ์ทางคลินิกเพื่อบรรเทาผลกระทบของการเสพติด [ 31 ] มีหลักฐานใดบ้างที่แสดงว่าการย้อนกลับภาวะ hypodopaminergic สามารถส่งผลดีต่อพฤติกรรมที่เกี่ยวข้องกับการใช้สารเสพติดหรือไม่ คำตอบคือใช่ การศึกษาของเราแสดงให้เห็นว่า การบังคับให้มีการผลิต D2R มากเกินไปภายในระบบรางวัลของหนูที่เคยได้รับโคเคนหรือแอลกอฮอล์ สามารถลดการใช้โคเคน [ 31 ] หรือแอลกอฮอล์ [ 32 ] ด้วยตนเองได้อย่างมีนัยสำคัญ ยิ่งไปกว่านั้น ในสัตว์ฟันแทะ เช่นเดียวกับในผู้เสพเมทแอมเฟตามีนในมนุษย์ [ 33 ] ระดับ D2R ในสมองส่วน striatal ที่ลดลงยังสัมพันธ์กับความหุนหันพลันแล่น และในสัตว์ฟันแทะ มันยังทำนายรูปแบบการใช้ยาด้วยตนเองแบบบังคับ (ดูด้านล่าง)
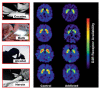
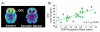
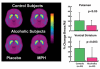
การศึกษาภาพยังแสดงให้เห็นว่า ในมนุษย์ การเสพติดเกี่ยวข้องกับการลดลงของการปล่อย DA ใน ventral striatum และในบริเวณอื่นๆ ของ striatum และการตอบสนองที่น่าพึงพอใจต่อยาที่ลดลงในผู้ใช้ยาที่ยังเสพอยู่และผู้ที่เลิกยาแล้ว ( รูปที่ 5 ) [ 34 ] นี่เป็นการค้นพบที่ไม่คาดคิด เนื่องจากมีการตั้งสมมติฐานว่าการเสพติดสะท้อนถึงความไวที่เพิ่มขึ้นต่อการตอบสนองที่ให้รางวัล (และด้วยเหตุนี้จึงเป็นการตอบสนองแบบโดปามีน) ต่อยา ในผู้เสพยา การลดลงของการปล่อย DA อาจสะท้อนถึงสรีรวิทยาประสาทที่ถูกรบกวนภายในวงจรการให้รางวัล ( เช่นในเซลล์ประสาท DA ที่ปล่อย DA ใน striatum) หรืออีกทางหนึ่ง การควบคุมแบบป้อนกลับของวงจรการให้รางวัลที่ถูกรบกวนโดยเส้นทาง prefrontal (การควบคุมการบริหาร) หรือ amygdalar (อารมณ์) (เส้นทาง prefrontal-striatal, amygdalarstriatal glutamatergic) เนื่องจากความผิดปกติของระบบโดปามีนในสมองส่วนสไตรอาตัมเพียงอย่างเดียว ดังที่พบในผู้เสพยาเสพติดเรื้อรัง ไม่สามารถอธิบายลักษณะเฉพาะของพฤติกรรมเสพติดได้ เช่น ความหุนหันพลันแล่น ความอยากยา และการกลับไปเสพยาซ้ำเมื่อได้รับสิ่งกระตุ้นที่เกี่ยวข้องกับยา จึงมีความเป็นไปได้สูงที่บริเวณสมองส่วนหน้า (รวมถึงอะมิกดาลา) ก็มีส่วนเกี่ยวข้องด้วยเช่นกัน เพราะการทำงานที่ผิดปกติของบริเวณเหล่านี้จะทำให้เกิดหรืออย่างน้อยก็มีอิทธิพลต่อลักษณะพฤติกรรมเหล่านี้
ระดับตัวรับ dopamine ที่ลดลง (DR2) ทำให้การควบคุมแรงกระตุ้นของเยื่อหุ้มสมอง prefrontal ลดลง
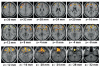
มีการตั้งสมมติฐานว่าการควบคุมที่บกพร่องต่อพฤติกรรมการใช้ยาอย่างบ้าคลั่งซึ่งเป็นลักษณะเฉพาะของการเสพติด อาจเกิดจากความผิดปกติเฉพาะในบริเวณส่วนหน้าของสมองบางส่วน [ 35 ] ปัจจุบันมีหลักฐานจำนวนมากที่สนับสนุนแนวคิดนี้ โดยเริ่มจากการศึกษาในสัตว์ที่สำรวจความเชื่อมโยงระหว่าง D2R และการควบคุมพฤติกรรม การทดลองกับหนูแสดงให้เห็นอย่างชัดเจนถึงความสัมพันธ์ระหว่าง D2R ที่ต่ำกับความหุนหันพลันแล่น [ 36 ] และระหว่างความหุนหันพลันแล่นกับการใช้ยาด้วยตนเอง [ 37 ] แต่ความเชื่อมโยงนั้นคืออะไร? ดังที่กล่าวไว้ก่อนหน้านี้ ในผู้เสพยา D2R ในสมองส่วน striatal ที่ต่ำกว่ามีความสัมพันธ์อย่างมีนัยสำคัญกับการเผาผลาญกลูโคสในสมองที่ต่ำกว่าในบริเวณสำคัญของ PFC เช่น OFC (เกี่ยวข้องกับการกำหนดความสำคัญ และการหยุดชะงักส่งผลให้เกิดพฤติกรรมที่บ้าคลั่ง) และใน CG (เกี่ยวข้องกับการควบคุมการยับยั้งและการตรวจสอบข้อผิดพลาด และการหยุดชะงักส่งผลให้เกิดความหุนหันพลันแล่น) ( รูปที่ 4B ) [ 38 , 39 ] นอกจากนี้ ในการศึกษาที่เราดำเนินการในบุคคล (ค่าเฉลี่ย SD ± อายุ 24 ± 3 ปี) ที่มีประวัติครอบครัวเป็นโรคพิษสุราเรื้อรัง แต่ตัวพวกเขาเองไม่ได้เป็นโรคพิษสุราเรื้อรัง เรายังพบความสัมพันธ์ที่สำคัญระหว่าง striatal D2R และการเผาผลาญในบริเวณหน้าผาก (CG, OFC และ dorsolateral PFC) และใน anterior insula (เกี่ยวข้องกับการรับรู้ภายในร่างกาย การตระหนักรู้ในตนเอง และความอยากยา) [ 40 ] ( รูปที่ 6 ) ที่น่าสนใจคือ บุคคลเหล่านี้มี striatal D2R สูงกว่ากลุ่มควบคุมที่จับคู่กันซึ่งไม่มีประวัติครอบครัวเป็นโรคพิษสุราเรื้อรัง แม้ว่าพวกเขาจะไม่มีความแตกต่างในการเผาผลาญบริเวณหน้าผากก็ตาม นอกจากนี้ ในกลุ่มควบคุม striatal D2R ไม่มีความสัมพันธ์กับการเผาผลาญบริเวณหน้าผาก สิ่งนี้ทำให้เราคาดการณ์ว่า striatal D2R ที่สูงกว่าปกติในผู้ที่มีความเสี่ยงทางพันธุกรรมสูงต่อโรคพิษสุราเรื้อรังนั้น ช่วยปกป้องพวกเขาจากโรคพิษสุราเรื้อรังได้บางส่วนโดยการเสริมสร้างกิจกรรมในบริเวณหน้าผาก เมื่อนำข้อมูลเหล่านี้มารวมกัน แสดงให้เห็นว่าระดับ D2R ที่สูงในสมองส่วนสไตรอาตัมอาจช่วยป้องกันการใช้ยาเสพติดและการเสพติดได้โดยการควบคุมลักษณะนิสัยที่หุนหันพลันแล่น กล่าว คือโดยการควบคุมวงจรที่เกี่ยวข้องกับการยับยั้งการตอบสนองทางพฤติกรรมและการควบคุมอารมณ์
ในทำนองเดียวกัน เราตั้งสมมติฐานว่าบริเวณพรีฟรอนทัลมีส่วนเกี่ยวข้องกับการลดลงของการปล่อย DA ในสไตรอาตัม (และการเสริมแรง) ที่พบในผู้ติดยาเสพติด เนื่องจากบริเวณเหล่านี้ควบคุมการทำงานของเซลล์ DA ในสมองส่วนกลางและการปล่อย DA ในสไตรอาตัม เพื่อทดสอบสมมติฐานนี้ เราได้ประเมินความสัมพันธ์ระหว่างการเผาผลาญพื้นฐานใน PFC และการเพิ่มขึ้นของ DA ในสไตรอาตัมที่เกิดจากการให้ MPH ทางหลอดเลือดดำในกลุ่มควบคุมและในผู้ติดสุราที่ได้รับการบำบัดแล้ว สอดคล้องกับสมมติฐาน ในผู้ติดสุรา เราไม่พบความสัมพันธ์ปกติระหว่างการเผาผลาญพื้นฐานของพรีฟรอนทัลและการปล่อย DA ในสไตรอาตัม ซึ่งบ่งชี้ว่าการลดลงอย่างมากของการปล่อย DA ในสไตรอาตัมที่พบในผู้ติดสุราสะท้อนให้เห็นถึงการควบคุมกิจกรรมของสมองที่ไม่เหมาะสมโดยบริเวณสมองพรีฟรอนทัลบางส่วน [ 34 ]
ดังนั้นเราจึงพบความสัมพันธ์ระหว่างกิจกรรมพื้นฐานที่ลดลงใน PFC และ D2R striatal ที่ลดลงในผู้ติดยาเสพติดและระหว่างกิจกรรม PFC พื้นฐานและการเปิดตัว DA ในการควบคุมที่ไม่ปรากฏในผู้ติดยาเสพติด ความสัมพันธ์เหล่านี้แสดงให้เห็นถึงการเชื่อมต่อที่แข็งแกร่งระหว่าง neuroadaptations ในเส้นทาง PFC และความผิดปกติของปลายน้ำในการให้รางวัล DA และระบบแรงจูงใจน่าจะเป็นเพราะอิทธิพลของ PFC ต่อแรงกระตุ้นและแรงกระตุ้น อย่างไรก็ตามสิ่งเหล่านี้ไม่สามารถอธิบายปรากฏการณ์พฤติกรรมเพิ่มเติมได้เช่นผลของการชี้นำที่เกี่ยวข้องกับยาในการกระตุ้นความอยากซึ่งน่าจะเกี่ยวข้องกับความทรงจำและวงจรการเรียนรู้
ความทรงจำที่มีเงื่อนไขและพฤติกรรมแบบแผนมาแทนที่ "สูง" เป็นไดรเวอร์
การกระตุ้นเซลล์ DA มากเกินไปใน ventral striatum จะสร้างการเชื่อมต่อการทำงานใหม่ในสมองระหว่างการกระทำเพื่อสนองความต้องการและเหตุการณ์รอบข้าง (เช่น สภาพแวดล้อม กิจวัตรการเตรียมยา ฯลฯ) ทำให้เกิดการเชื่อมโยงการเรียนรู้ใหม่ที่ทรงพลังซึ่งสามารถกระตุ้นพฤติกรรมได้ ในที่สุด เพียงแค่ความทรงจำหรือความคาดหวังเกี่ยวกับยา ก็สามารถกระตุ้นพฤติกรรมหุนหันพลันแล่นที่เป็นลักษณะเฉพาะของผู้ติดยาได้ เมื่อมีการใช้ยาซ้ำๆ การทำงานของเซลล์ DA ใน striatum จะเริ่มเปลี่ยนแปลงเคมีประสาทที่อยู่เบื้องหลังการเรียนรู้แบบเชื่อมโยง ซึ่งจะช่วยอำนวยความสะดวกในการรวมตัวของร่องรอยความทรงจำที่ไม่เหมาะสมที่เชื่อมโยงกับยา ซึ่งช่วยอธิบายความสามารถของสิ่งเร้าที่เกี่ยวข้องกับยาทุกชนิด (ในความคาดหวังที่เรียนรู้ว่าจะได้รับรางวัลจากยาเมื่อสัมผัสกับสิ่งเร้าเหล่านี้) [ 41 ] ในการกระตุ้นการทำงานของเซลล์ DA ได้อย่างง่ายดาย และเนื่องจากบทบาทของ DA ในแรงจูงใจ การเพิ่มขึ้นของ DA เหล่านี้จึงกระตุ้นแรงผลักดันแรงจูงใจที่จำเป็นในการได้รับรางวัล [ 42 ] อันที่จริง เมื่อหนูทดลองสัมผัสกับสิ่งเร้าที่เป็นกลางซึ่งจับคู่กับยา (แบบมีเงื่อนไข) ซ้ำๆ กัน จะทำให้ระดับ DA เพิ่มขึ้นและกระตุ้นให้เกิดการใช้ยาด้วยตนเองอีกครั้ง [ 43 ] การตอบสนองแบบมีเงื่อนไขดังกล่าวมีความสำคัญทางคลินิกในความผิดปกติของการใช้สารเสพติด เนื่องจากเป็นสาเหตุที่ทำให้ผู้ติดยาเสพติดมีโอกาสกลับไปเสพยาซ้ำสูง แม้หลังจากระยะเวลาการล้างพิษที่ยาวนานแล้วก็ตาม ปัจจุบัน เทคนิคการถ่ายภาพสมองช่วยให้เราสามารถทดสอบได้ว่าการที่มนุษย์สัมผัสกับสิ่งเร้าที่เกี่ยวข้องกับยาเสพติดสามารถกระตุ้นความอยากยาได้เช่นเดียวกับที่พบในสัตว์ทดลองหรือไม่
เมื่อมีการใช้ยาซ้ำๆ การทำงานของเซลล์ DA ในสไตรอาตัมจะเริ่มเปลี่ยนแปลงเคมีประสาทที่อยู่เบื้องหลังการเรียนรู้แบบเชื่อมโยง ซึ่งจะช่วยอำนวยความสะดวกในการรวมตัวของร่องรอยความทรงจำที่ไม่เหมาะสมที่เชื่อมโยงกับยา ซึ่งช่วยอธิบายความสามารถของสิ่งเร้าที่เกี่ยวข้องกับยาทุกชนิด (ในความคาดหวังที่เรียนรู้ว่าจะได้รับรางวัลจากยาเมื่อสัมผัสกับสิ่งเร้าเหล่านี้) [ 41 ] ในการกระตุ้นการทำงานของเซลล์ DA ได้อย่างง่ายดาย และเนื่องจากบทบาทของ DA ในแรงจูงใจ การเพิ่มขึ้นของ DA เหล่านี้จึงกระตุ้นแรงผลักดันด้านแรงจูงใจที่จำเป็นในการได้รับรางวัล [ 42 ] อันที่จริง เมื่อหนูถูกสัมผัสกับสิ่งเร้าที่เป็นกลางที่จับคู่กับยาซ้ำๆ (แบบมีเงื่อนไข) มันสามารถกระตุ้นให้ DA เพิ่มขึ้นและฟื้นฟูการใช้ยาด้วยตนเองได้ [ 43 ] การตอบสนองแบบมีเงื่อนไขดังกล่าวมีความเกี่ยวข้องทางคลินิกในความผิดปกติของการใช้สารเสพติด เนื่องจากเป็นสาเหตุที่ทำให้ผู้ติดยาเสพติดมีโอกาสสูงที่จะกลับไปเสพยาอีกครั้งแม้หลังจากระยะเวลาการล้างพิษที่ยาวนาน ปัจจุบัน เทคนิคการถ่ายภาพสมองทำให้เราสามารถทดสอบได้ว่า การที่มนุษย์สัมผัสกับสิ่งกระตุ้นที่เกี่ยวข้องกับยาเสพติด สามารถกระตุ้นความอยากยาเสพติดได้หรือไม่ เช่นเดียวกับที่พบในสัตว์ทดลอง
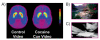
คำถามนี้ได้รับการตรวจสอบในผู้เสพโคเคนอย่างต่อเนื่อง การใช้ PET และ [ 11C ]raclopride การศึกษาอิสระสองชิ้นแสดงให้เห็นว่าการสัมผัสกับวิดีโอที่มีสิ่งเร้าเกี่ยวกับโคเคน (ของผู้ที่กำลังสูบโคเคน) แต่ไม่ใช่กับวิดีโอที่เป็นกลาง (ของทิวทัศน์ธรรมชาติ) ทำให้ระดับ DA ในสมองส่วน striatal เพิ่มขึ้นในผู้ที่ติดโคเคน ( รูปที่ 7 ) และการเพิ่มขึ้นของ DA นั้นมีความสัมพันธ์กับรายงานความรู้สึกอยากยา [ 44 , 45 ] ยิ่งการเพิ่มขึ้นของ DA ที่เกิดจากการสัมผัสกับวิดีโอที่มีสิ่งเร้าเกี่ยวกับโคเคนสูงเท่าใด ความอยากยาก็ยิ่งรุนแรงมากขึ้นเท่านั้น นอกจากนี้ ขนาดของการเพิ่มขึ้นของ DA ยังมีความสัมพันธ์กับคะแนนความรุนแรงของการติดยา ซึ่งเน้นย้ำถึงความสำคัญของการตอบสนองแบบมีเงื่อนไขในกลุ่มอาการทางคลินิกของการติดยา
อย่างไรก็ตาม สิ่งสำคัญคือต้องเน้นย้ำว่า แม้จะมีการสันนิษฐานว่าความสัมพันธ์ที่ไม่เหมาะสมเหล่านี้มีความแข็งแกร่ง แต่เราเพิ่งรวบรวมหลักฐานใหม่ที่ชี้ให้เห็นว่าผู้เสพโคเคนยังคงมีความสามารถบางอย่างในการยับยั้งความอยากยาโดยตั้งใจ ดังนั้น กลยุทธ์ในการเสริมสร้างการควบคุมฟรอนโต-สไตรเอทัลอาจให้ประโยชน์ในการรักษาได้ [ 46 ]
วางมันทั้งหมดเข้าด้วยกัน
คุณสมบัติที่อันตรายที่สุดบางประการของการติดยาเสพติดคือความอยากอย่างท่วมท้นที่จะเสพยาเสพติดที่สามารถกลับคืนสู่สภาพเดิมแม้กระทั่งหลังจากการเลิกยามานานหลายปีและความสามารถที่ลดลงอย่างรุนแรงของบุคคลที่ติดยาเสพติด
เราได้เสนอแบบจำลองของการเสพติด [ 47 ] ที่อธิบายลักษณะหลายมิติของโรคนี้โดยเสนอเครือข่ายของวงจรที่เชื่อมโยงกันสี่วงจร ซึ่งผลลัพธ์การทำงานผิดปกติที่รวมกันสามารถอธิบายลักษณะพฤติกรรมแบบแผนของการเสพติดได้หลายอย่าง: (a) รางวัล รวมถึงนิวเคลียสหลายแห่งในฐานสมอง โดยเฉพาะอย่างยิ่งสไตรอาตัมส่วนล่าง ซึ่ง Nac ได้รับอินพุตจากบริเวณเท็กเมนตัมส่วนล่างและส่งต่อข้อมูลไปยังพัลลิดัมส่วนล่าง (VP); (b) แรงจูงใจ/แรงขับ ตั้งอยู่ใน OFC, คอร์เทกซ์ใต้คอลโลซัล, สไตรอาตัมส่วนบน และคอร์เทกซ์มอเตอร์; (c) ความจำและการเรียนรู้ ตั้งอยู่ในอะมิกดาลาและฮิปโปแคมปัส; และ (d) การวางแผนและการควบคุม ตั้งอยู่ในคอร์เทกซ์พรีฟรอนทัลด้านข้างส่วนบน, CG ส่วนหน้า และคอร์เทกซ์ฟรอนทัลส่วนล่าง วงจรทั้งสี่นี้ได้รับการกระตุ้นโดยตรงจากเซลล์ประสาท DA แต่ยังเชื่อมต่อกันผ่านการฉายภาพโดยตรงหรือโดยอ้อม (ส่วนใหญ่เป็นกลูตาเมต)
วงจรทั้งสี่ในแบบจำลองนี้ทำงานร่วมกัน และการทำงานของวงจรจะเปลี่ยนแปลงไปตามประสบการณ์ แต่ละวงจรเชื่อมโยงกับแนวคิดที่สำคัญ ได้แก่ ความโดดเด่น (รางวัล) สภาวะภายใน (แรงจูงใจ/แรงขับ) การเชื่อมโยงที่เรียนรู้ (ความทรงจำ การปรับสภาพ) และการแก้ไขความขัดแย้ง (การควบคุม) นอกจากนี้ วงจรเหล่านี้ยังโต้ตอบกับวงจรที่เกี่ยวข้องกับอารมณ์ (รวมถึงปฏิกิริยาต่อความเครียด) [ 48 ] และกับการรับรู้ภายในร่างกาย (ซึ่งส่งผลให้เกิดการรับรู้ถึงความอยากยาและอารมณ์) [ 49 ] เราได้เสนอว่ารูปแบบกิจกรรมในเครือข่ายวงจรทั้งสี่ที่ระบุไว้ในที่นี้มีอิทธิพลต่อวิธีที่บุคคลปกติทำการเลือกท่ามกลางทางเลือกที่แข่งขันกัน การเลือกเหล่านี้ได้รับอิทธิพลอย่างเป็นระบบจากวงจรรางวัล ความทรงจำ/การปรับสภาพ แรงจูงใจ และการควบคุม และสิ่งเหล่านี้จะถูกปรับเปลี่ยนโดยวงจรที่อยู่เบื้องหลังอารมณ์และการรับรู้ ( รูปที่ 8A )
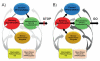
การตอบสนองต่อสิ่งเร้าได้รับผลกระทบจากความโดดเด่นชั่วขณะของมัน กล่าวคือ รางวัลที่คาดหวัง ในทางกลับกัน การคาดหวังรางวัลจะถูกประมวลผลบางส่วนโดยเซลล์ประสาท DA ที่ส่งไปยัง ventral striatum และได้รับอิทธิพลจากการส่งกลูตาเมตจาก OFC (ซึ่งกำหนดค่าความโดดเด่นตามบริบท) และอะมิกดาลา/ฮิปโปแคมปัส (ซึ่งเป็นตัวกลางในการตอบสนองแบบมีเงื่อนไขและการระลึกถึงความทรงจำ) ค่าของสิ่งเร้าจะถูกถ่วงน้ำหนัก (เปรียบเทียบ) กับสิ่งเร้าทางเลือกอื่นๆ แต่ยังเปลี่ยนแปลงไปตามความต้องการภายในของแต่ละบุคคล ซึ่งถูกปรับเปลี่ยนโดยอารมณ์ (รวมถึงปฏิกิริยาต่อความเครียด) และการรับรู้ภายในร่างกาย โดยเฉพาะอย่างยิ่ง การสัมผัสกับความเครียดจะเพิ่มค่าความโดดเด่นของยาเสพติด ในขณะเดียวกันก็ลดการควบคุมของสมองส่วนหน้าต่ออะมิกดาลา [ 50 ] นอกจากนี้ เนื่องจากการสัมผัสยาเสพติดเรื้อรังเชื่อมโยงกับความไวต่อการตอบสนองต่อความเครียดที่เพิ่มขึ้น นี่จึงอธิบายได้ว่าทำไมความเครียดจึงกระตุ้นให้เกิดการกลับไปใช้ยาเสพติดบ่อยครั้งในสถานการณ์ทางคลินิก ยิ่งค่าความโดดเด่นของสิ่งเร้าสูงขึ้น ซึ่งส่วนหนึ่งเกิดจากประสบการณ์ที่จดจำไว้ก่อนหน้านี้ การทำงานของวงจรแรงจูงใจก็จะยิ่งมากขึ้น และแรงผลักดันในการแสวงหาสิ่งเร้าก็จะยิ่งมากขึ้น การตัดสินใจทางปัญญาที่จะกระทำการ (หรือไม่กระทำการ) เพื่อแสวงหาสิ่งเร้าจะถูกประมวลผลบางส่วนโดย PFC และ CG ซึ่งจะชั่งน้ำหนักระหว่างผลลัพธ์เชิงบวกในทันทีกับผลลัพธ์เชิงลบที่ล่าช้า และโดยคอร์เทกซ์ส่วนหน้าด้านล่าง (บริเวณบรอดแมน 44) ซึ่งทำงานเพื่อยับยั้งการตอบสนองที่เด่นชัดในการกระทำ [ 51 ]
ตามแบบจำลองนี้ ในผู้ติดยา ( รูปที่ 8B ) ค่าความโดดเด่นของยาเสพติดและสิ่งเร้าที่เกี่ยวข้องจะเพิ่มขึ้น ในขณะที่รางวัลอื่นๆ (ตามธรรมชาติ) มีค่าความโดดเด่นลดลงอย่างเห็นได้ชัด ซึ่งอาจอธิบายถึงแรงจูงใจที่เพิ่มขึ้นในการแสวงหายา อย่างไรก็ตาม การได้รับยาอย่างเฉียบพลันยังทำให้เกณฑ์รางวัลถูกรีเซ็ต ส่งผลให้วงจรรางวัลมีความไวต่อสิ่งเสริมแรงลดลง [ 52 ] ซึ่งช่วยอธิบายถึงค่าของสิ่งเสริมแรงที่ไม่ใช่ยาที่ลดลงในผู้ติดยา อีกเหตุผลหนึ่งที่ทำให้ยาเสพติดมีความโดดเด่นมากขึ้นคือ การขาดการปรับตัวของปฏิกิริยา DA ต่อยาเสพติด (ความทนทาน) เมื่อเทียบกับการปรับตัวตามปกติที่มีอยู่สำหรับรางวัลตามธรรมชาติและส่งผลให้เกิดความอิ่มตัว [ 53 ]
ยิ่งไปกว่านั้น การสัมผัสกับสิ่งเร้าที่ถูกปรับสภาพนั้นเพียงพอที่จะเพิ่มเกณฑ์รางวัล [ 54 ] ดังนั้น เราจึงคาดการณ์ว่าในบุคคลที่ติดยาเสพติด การสัมผัสกับสภาพแวดล้อมที่มีสัญญาณที่ถูกปรับสภาพจะยิ่งทำให้ความไวต่อรางวัลตามธรรมชาติลดลง ในกรณีที่ไม่มีการแข่งขันจากตัวเสริมแรงอื่น การเรียนรู้แบบมีเงื่อนไขจะยกระดับการได้มาซึ่งยาเสพติดไปสู่ระดับแรงจูงใจหลักสำหรับแต่ละบุคคล เราตั้งสมมติฐานว่าสัญญาณยาเสพติด (หรือความเครียด) ส่งผลให้ระดับ DA ใน Nac ใน striatum ส่วนล่างและใน striatum ส่วนบนเพิ่มขึ้นอย่างรวดเร็ว ซึ่งเป็นแรงผลักดันให้เกิดแรงจูงใจในการเสพยา และไม่สามารถถูกต่อต้านได้อย่างเหมาะสมโดย PFC ที่ทำงานผิดปกติ ดังนั้น เมื่อบริโภคยาและเกิดอาการมึนเมา การเพิ่มขึ้นของสัญญาณ DA จะส่งผลให้เกิดการกระตุ้นมากเกินไปของวงจรแรงจูงใจ/แรงขับและวงจรความจำ ซึ่งจะทำให้ PFC ไม่ทำงาน (การยับยั้งของสมองส่วนหน้าเกิดขึ้นพร้อมกับการกระตุ้นอะมิกดาลาอย่างรุนแรง) [ 50 ] ซึ่งจะปิดกั้นพลังของ PFC ในการควบคุมวงจรแรงจูงใจ/แรงขับ หากปราศจากการควบคุมยับยั้งนี้ จะเกิดวงจรป้อนกลับเชิงบวกขึ้น ซึ่งส่งผลให้เกิดการเสพยาอย่างต่อเนื่อง เนื่องจากปฏิสัมพันธ์ระหว่างวงจรเป็นแบบสองทิศทาง การกระตุ้นเครือข่ายในระหว่างการมึนเมาจึงยิ่งเสริมคุณค่าความโดดเด่นของยาและการปรับสภาพต่อสิ่งเร้าที่เกี่ยวข้องกับยาให้แข็งแกร่งขึ้น
สรุป
โดยสรุป เราเสนอแบบจำลองที่อธิบายการเสพติดดังนี้: ในระหว่างการเสพติด คุณค่าที่เพิ่มขึ้นของสิ่งเร้าที่เกี่ยวข้องกับยาในวงจรความจำจะกระตุ้นความคาดหวังของรางวัลและเพิ่มแรงจูงใจในการเสพยา โดยเอาชนะการควบคุมการยับยั้งที่เกิดจาก PFC ที่ทำงานผิดปกติอยู่แล้ว แม้ว่าการเพิ่มขึ้นของ DA ที่เกิดจากยาจะลดลงอย่างเห็นได้ชัดในผู้ที่ติดยา แต่ผลทางเภสัชวิทยาของยาจะกลายเป็นปฏิกิริยาตอบสนองแบบมีเงื่อนไขในตัวเอง ซึ่งยิ่งกระตุ้นแรงจูงใจในการเสพยาและส่งเสริมวงจรป้อนกลับเชิงบวกที่ไม่ถูกขัดขวางอีกต่อไป เนื่องจากวงจรควบคุมของสมองส่วนหน้าถูกตัดขาด ในขณะเดียวกัน การเสพติดก็มีแนวโน้มที่จะปรับวงจรที่สร้างอารมณ์และความตระหนักรู้ (แสดงด้วยเฉดสีเทาที่เข้มกว่า) ( รูปที่ 8B ) ในลักษณะที่หากได้รับการยืนยันจากการทดลอง จะยิ่งทำให้สมดุลเปลี่ยนไปจากการควบคุมการยับยั้งและไปสู่ความอยากและการเสพยาอย่างบ้าคลั่ง
เรายอมรับว่านี่เป็นรูปแบบที่ง่ายขึ้น: เราตระหนักดีว่าสมองส่วนอื่น ๆ ต้องมีส่วนร่วมในวงจรเหล่านี้ด้วยเช่นกันภูมิภาคหนึ่งอาจมีส่วนร่วมในหลายวงจรและวงจรอื่น ๆ ก็น่าจะเกี่ยวข้องกับการติดยาด้วย นอกจากนี้แม้ว่ารุ่นนี้มุ่งเน้นไปที่ DA แต่ก็เห็นได้ชัดจากการศึกษาพรีคลินิกที่การปรับเปลี่ยนในการฉายกลูตาเมตส์จิกเป็นสื่อกลางในการดัดแปลงหลายอย่างที่พบในการติดยาเสพติดและเราได้พูดถึงที่นี่ นอกจากนี้ยังเห็นได้จากการศึกษา preclinical ที่สารสื่อประสาทอื่น ๆ ที่เกี่ยวข้องในการเสริมฤทธิ์ของยาเสพติดรวมทั้ง cannabinoids และ opioids น่าเสียดายที่เมื่อไม่นานมานี้การ จำกัด การเข้าถึงตัวติดตามคลื่นวิทยุสำหรับการถ่ายภาพด้วย PET ได้จำกัดความสามารถในการตรวจสอบการมีส่วนร่วมของสารสื่อประสาทอื่น ๆ ในการให้รางวัลยาเสพติดและการติดยา
ตัวย่อ
- AMPA
- α-อะมิโน 3-ไฮดรอกซิ-5-methyl-4-isoxazole-propionate
- CG
- cingulate gyrus
- CTX
- เยื่อหุ้มสมอง
- D2R
- ตัวรับประเภทโดปามีน 2 / 3
- DA
- โดปามีน
- FDG
- fluorodeoxyglucose
- GABA
- กรด am-aminobutyiric
- HPA
- แกนใต้สมอง hypothalamic
- ไมล์ต่อชั่วโมง
- methylphenidate
- Nac
- นิวเคลียส accumbens
- NMDA
- n-methyl-d- กรดบางส่วน
- OFC
- เยื่อหุ้มสมองวงโคจร
- PET
- เอกซเรย์ปล่อยโพซิตรอน
- ฉิบหาย
- prefrontal นอก
- VP
- หน้าท้อง pallidum
อ้างอิง
55. Fowler JS, Volkow ND, Logan J และคณะ การดูดซึมอย่างรวดเร็วและการจับตัวที่ยาวนานของเมทแอมเฟตามีนในสมองมนุษย์: การเปรียบเทียบกับโคเคนNeuroimage. 2008; 43 :756–63. [ บทความฟรีใน PMC ] [ PubMed ]