Neurosci Biobehav Rev. 2011ม.ค.;35(3):939-55. doi: 10.1016/j.neubiorev.2010.10.014. Epub 2010 พ.ย. 2.
เมลิส เอ็มอาร์1 , อาร์จิโอลาส เอ.
- 1เบอร์นาร์ดบี. โบรดี้กรมประสาทวิทยา, มหาวิทยาลัย Cagliari, Cittadella Universitaria, 09042 Monserrato, CA, อิตาลี [ป้องกันอีเมล]
บทคัดย่อ
ออกซิโตซินเป็นสารกระตุ้นที่มีศักยภาพของการแข็งตัวของอวัยวะเพศชายเมื่อฉีดเข้าไปในระบบประสาทส่วนกลาง ในหนูตัวผู้บริเวณสมองที่ไวต่อการกระตุ้นของอุ้งอุ้งคือภาวะนิวเคลียส paraventricular ของไฮโปทาลามัส นิวเคลียสและบริเวณโดยรอบนี้มีเซลล์ของเซลล์อุ้งอุ้งทั้งหมดที่ยื่นออกไปยังบริเวณสมองส่วนที่ผิดปกติและเส้นประสาทไขสันหลัง การตรวจสอบนี้แสดงให้เห็นว่าอุ้งมีการแข็งตัวของอวัยวะเพศแข็งตัวเช่นกันเมื่อฉีดเข้าไปในบางส่วนของพื้นที่เหล่านี้ (เช่นพื้นที่หน้าท้องหน้าท้อง, หน้าท้องย่อยของฮิบโปแคมปัส, นิวเคลียสเยื่อหุ้มสมองด้านหลังของ amygdala และ thoraco-lumbar spinal) การศึกษา Microinject รวมกับ microdialysis ภายในสมองและการศึกษาอิมมูโนฟลูออเรสเซนต์คู่แนะนำว่า oxytocin ในพื้นที่เหล่านี้เปิดใช้งานโดยตรงหรือโดยอ้อม (ส่วนใหญ่ผ่านกรดกลูตามิก) เซลล์ประสาท mesolimbic dopaminergic โดปามีนที่ปล่อยออกมาในนิวเคลียส accumbens จะเปิดใช้งานเซลล์ประสาทที่นำไปสู่การเปิดใช้งานของเซลล์ประสาท dopaminergic dopaminergic ในนิวเคลียส paraventricular การเปิดใช้งานนี้ไม่เพียง แต่เซลล์ประสาท oxytocinergic ฉายไปที่เส้นประสาทไขสันหลังและการสร้างอวัยวะเพศชายเป็นสื่อกลาง แต่ยังรวมถึงผู้ที่ฉายไปยังพื้นที่พิเศษ hypothalamic ข้างต้น, ปรับโดยตรงหรือโดยอ้อม (ผ่านกลูตามิกกรด) กิจกรรมของ mesolimbic dopaminergic การรวมกันของเซลล์ประสาทเหล่านี้อาจเป็นวงจรสมมุติฐานที่ซับซ้อนซึ่งมีบทบาทไม่เพียง แต่ในช่วงกิจกรรมทางเพศของกิจกรรมทางเพศ (หน้าที่หย่อนสมรรถภาพทางเพศและการสังวาส) แต่ยังอยู่ในแง่ของแรงจูงใจและการให้รางวัล
1.Introduction
การแข็งตัวของอวัยวะเพศชายเป็นปฏิกิริยาทางเพศของเพศชายที่มีบทบาทสำคัญในการสืบพันธุ์ของสัตว์เลี้ยงลูกด้วยนมรวมถึงมนุษย์ และสามารถพบได้ในบริบทที่แตกต่างไปจากที่เกี่ยวข้องกับการสืบพันธุ์โดยตรง ขึ้นอยู่กับบริบทที่เกิดการแข็งตัวของอวัยวะเพศชาย กลไกทางประสาทส่วนกลางและส่วนปลาย และ/หรือกลไกทางฮอร์โมนที่แตกต่างกันจะเข้ามามีส่วนร่วมในการควบคุม (ดู Meisel และ Sachs, 1994; Argiolas และ Melis, 1995, 2004, 2005; Sachs, 2000, 2007; McKenna, 2000; Giuliano และ Rampin, 2000, 2004; Andersson, 2001; Melis และ Argiolas, 1995a, 2003; Hull et al., 2002) ในบรรดาสารสื่อประสาทและเปปไทด์ประสาทส่วนกลางที่ควบคุมการแข็งตัวของอวัยวะเพศชาย สารที่รู้จักกันดีที่สุด ได้แก่โดปามีน เซโรโทนิน กรดอะมิโนกระตุ้น ไนตริกออกไซด์ อะดรีโนคอร์ติโคโทรปิน ออกซิโทซิน และเปปไทด์โอปิออยด์ สารเหล่านี้สามารถช่วยกระตุ้นหรือยับยั้งการแข็งตัวของอวัยวะเพศชายได้ โดยออกฤทธิ์ในหลายบริเวณของสมองได้แก่ บริเวณมีเดียลพรีออปติก (medial preoptic area), นิวเคลียสพาราเวนทริคูลาร์ของไฮโปทาลามัส (paraventricular nucleus of the hypothalamus), บริเวณเวนทรัลเทกเมนทัล (ventral tegmental area), ฮิปโปแคมปัส (hippocampus), อะมิกดาลา (amygdala), นิวเคลียสเบดของสเตรียเทอร์มินาลิส (bed nucleus of the stria terminalis), นิวเคลียสแอคคัมเบนส์ (nucleus accumbens), เมดุลลาออบลองกาตา (medulla oblongata) และไขสันหลัง (ตารางที่ 1) (ดู Meisel และ Sachs, 1994; Witt และ Insel, 1994; Stancampiano et al., 1994; Argiolas และ Melis, 1995, 2005; Argiolas, 1999; Bancila et al., 2002; Giuliano และ Rampin, 2000, McKenna, 2000; Andersson, 2001; Hull et al., 2002; Coolen et al.) (และคณะ, 2004)
ออกซิโตซิน, เปปไทด์ neurohypophyseal ที่รู้จักกันดีสำหรับบทบาทของฮอร์โมนในการให้นมและการคลอดบุตร, มีอยู่ในเพศหญิงและเพศชาย, ไม่เพียง แต่ในเซลล์ประสาทที่มีร่างกายเซลล์ตั้งอยู่ในนิวเคลียส paraventricular และ supraoptic ของ hypothalamus จากนิวเคลียส paraventricular และโครงสร้างโดยรอบไปยังพื้นที่สมอง extrahypothalamic (เช่นกะบัง, พื้นที่หน้าท้องหน้าท้อง, ฮิปโปแคมปัส, amygdala, ไขกระดูก oblongata และไขสันหลัง) เซลล์ประสาทเหล่านี้มีความคิดที่จะมีส่วนร่วมในการทำงานส่วนกลางหลายอย่างเช่นความจำการเรียนรู้พฤติกรรมในเครือและสังคม - ทางเพศรวมถึงการแข็งตัวของอวัยวะเพศชายและพฤติกรรมการมีเพศสัมพันธ์ (ดู Buijs, 1978; Sofroniew, 1983; Argiolas และ Gessa, 1991; Pedersen et al) ., 1992; Carter, 1992; Wagner and Clemens, 1993; Ivell และ Russel, 1995; Carter และคณะ, 1997; Tang et al., 1998; Veronneau-Longueville และคณะ, 1999) อันที่จริงยาออกซิโทซินช่วยให้สมรรถภาพทางเพศและพฤติกรรมทางเพศของผู้ชายในหนูหนูกระต่ายและลิง (ดูอาร์มีโอและ Gessa, 1991; คาร์เตอร์, 1992, Pedersen et al., 1992, อาร์มีโอและเมลิส, 1995; สิ่งนี้อาจเกิดขึ้นได้ในมนุษย์เนื่องจากพลาสม่าออกซิโตซินในพลาสมาเพิ่มขึ้นจากสิ่งเร้าทางเพศโดยเฉพาะอย่างยิ่งเมื่อมีการหลั่ง (Carmichael et al., 2004; Murphy et al., 1999) และโดยการจัดการเต้านมและอวัยวะสืบพันธุ์ การมีเพศสัมพันธ์ (Tindall, 1987)
ผลการอำนวยความสะดวกของออกซิโตซินต่อพฤติกรรมทางเพศของชายแสดงให้เห็นเป็นครั้งแรกโดยความสามารถของออกซิโตซินทางหลอดเลือดดำเพื่อลดความล่าช้าในการหลั่งครั้งแรกและเพื่อชะลอความอ่อนล้าทางเพศของกระต่ายเพศชายที่จับคู่กับเพศหญิง อย่างไรก็ตามผลกระทบทางเพศของออกซิโตซินนั้นได้รับการยอมรับอย่างชัดเจนในช่วงอายุแปดสิบเท่านั้น ออกซิโตซินที่ได้จากส่วนกลางในปริมาณนาโนกรัมนั้นสามารถที่จะทำให้เกิดการแข็งตัวของอวัยวะเพศชาย (Argiolas et al., 1963, 1985) และเพื่อปรับปรุงพฤติกรรมการมีเพศสัมพันธ์ (Arletti et al., 1986) ในหนูตัวผู้และ Arletti และ Bertolini, 1985; Caldwell et al., 1985) เห็นได้ชัดว่ากระทำโดยตัวรับ oxytocinergic ประเภทมดลูก (ดู Argiolas and Melis, 1986, 1995, Argiolas, 2004; Melis และ Argiolas, 1999; ออกซิโตซินช่วยปรับปรุงพฤติกรรมทางเพศไม่เพียง แต่ในหนูตัวผู้ที่มีสมรรถภาพทางเพศ (Arletti et al., 2003) แต่ยังอยู่ในหนูตัวผู้ที่มีอายุมากกว่า (Arletti et al., 1985) และเด่นกว่า แต่ไม่ใช่ในกลุ่มลิงกระรอกตัวผู้ , 1990)
ฤทธิ์กระตุ้นการแข็งตัวของอวัยวะเพศของออกซิโทซินขึ้นอยู่กับเทสโทสเตอโรน เนื่องจากฤทธิ์นี้จะหายไปเมื่อตัดต่อมใต้สมองออกและตอน และจะกลับมาทำงานได้อีกครั้งเมื่อเสริมด้วยเทสโทสเตอโรนหรือสารเมตาบอไลต์ของมัน ได้แก่ เอสตราไดออลและ 5-ไดไฮโดรเทสโทสเตอโรน (Melis et al., 1994a) บริเวณสมองที่ไวต่อการกระตุ้นการแข็งตัวของอวัยวะเพศโดยออกซิโทซินมากที่สุดคือ นิวเคลียสพาราเวนทริคูลาร์ของไฮโปทาลามัส (Melis et al., 1986) ซึ่งเป็นจุดเริ่มต้นของการฉายภาพออกซิโทซินเนอร์จิกนอกไฮโปทาลามัสทั้งหมด (ดูด้านบน) ในบริเวณนี้ พบว่าออกซิโทซินสามารถกระตุ้นการแข็งตัวของอวัยวะเพศ (และการหาว) ได้เมื่อฉีดในปริมาณต่ำเพียง 3 พิโคโมล (ดูหัวข้อ 2.1 ด้านล่าง) ออกซิโทซินทำให้เกิดการแข็งตัวของอวัยวะเพศชายได้เมื่อฉีดเข้าไปในบริเวณ CA1 ของฮิปโปแคมปัสทั้งสองข้าง แต่ไม่เกิดในบริเวณดอร์ซัลซับบิคูลัม (ดูหัวข้อ 2.3 ด้านล่าง) เซปตัมด้านข้าง นิวเคลียสคอเดต บริเวณพรีออปติกส่วนกลาง นิวเคลียสเวนโทรมีเดียลของไฮโปทาลามัส และนิวเคลียสซูพราออปติก (Melis et al., 1986) สำหรับกลไกที่ออกซิโทซินออกฤทธิ์ในนิวเคลียสพาราเวนทริคูลาร์เพื่อกระตุ้นการตอบสนองทางเพศนี้ การศึกษาจำนวนมากชี้ให้เห็นว่าออกซิโทซินกระตุ้นเซลล์ประสาทของตัวเองสอดคล้องกับสมมติฐานนี้ การมีปฏิสัมพันธ์ทางเพศจะเพิ่มระดับ FOS ซึ่งเป็นผลิตภัณฑ์ของยีน c-fos ที่แสดงออกอย่างรวดเร็วในเซลล์ประสาทออกซิโทซินเนอร์จิกในพาราเวนทริคูลาร์ที่ส่งไปยังไขสันหลัง ซึ่งเกี่ยวข้องกับการควบคุมการแข็งตัวของอวัยวะเพศชาย (ดู Witt และ Insel, 1994 และเอกสารอ้างอิงในนั้น) และภาวะเสื่อมสมรรถภาพทางเพศ (เช่น ความไม่สามารถของหนูตัวผู้ที่โตเต็มวัยในการผสมพันธุ์กับหนูตัวเมียที่ถูกตัดรังไข่และได้รับการกระตุ้นด้วยเอสโตรเจน-โปรเจสเตอโรน) ในหนูตัวผู้มีความเกี่ยวข้องกับระดับ mRNA ของออกซิโทซินที่ต่ำในนิวเคลียสพาราเวนทริคูลาร์ของไฮโปทาลามัส (Arletti et al., 1997)
ในปัจจุบันยังไม่ชัดเจนว่าออกซิโทซินมีอิทธิพลต่อระยะเตรียมตัวหรือระยะการมีเพศสัมพันธ์หรือไม่เนื่องจากออกซิโทซินกระตุ้นการแข็งตัวของอวัยวะเพศชาย และผลหลักของออกซิโทซินต่อพฤติกรรมการร่วมเพศคือการลดระยะเวลาหลังการหลั่งน้ำอสุจิในหนูตัวผู้ (Arletti et al., 1985) จึงเป็นเหตุผลที่สมควรที่จะสันนิษฐานว่าเปปไทด์นี้ช่วยปรับปรุงสมรรถภาพทางเพศ อย่างไรก็ตาม เนื่องจากออกซิโทซินยังช่วยเพิ่มปฏิสัมพันธ์ทางสังคมและทางเพศ (ดู Pedersen et al., 1992; Carter et al., 1997; Ivell and Russel, 1995) และสารต้านตัวรับออกซิโทซินช่วยป้องกันการแข็งตัวของอวัยวะเพศโดยไม่สัมผัส (Melis et al., 1999a) ซึ่งถือเป็นดัชนีบ่งชี้การกระตุ้นทางเพศ (ดู Sachs, 1997, 2000, 2007; Melis et al., 1998, 1999b และเอกสารอ้างอิงในนั้น) จึงไม่อาจตัดความเป็นไปได้ที่ออกซิโทซินจะมีบทบาทในการกระตุ้นทางเพศและแรงจูงใจทางเพศได้
บทความนี้สรุปผลการศึกษาที่ตีพิมพ์และยังไม่ตีพิมพ์ล่าสุด ซึ่งแสดงให้เห็นว่าออกซิโทซินกระตุ้นการแข็งตัวของอวัยวะเพศชายไม่เพียงแต่เมื่อฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ของไฮโปทาลามัสเท่านั้น แต่ยังรวมถึงบริเวณสมองนอกไฮโปทาลามัสอื่นๆ ด้วย เช่น บริเวณเวนทรัลเทกเมนทัล (Melis et al., 2007, 2009a; Succu et al., 2008) บริเวณเวนทรัลซับบิคูลัมของฮิปโปแคมปัส และนิวเคลียสส่วนหลังของอะมิกดาลา (Melis et al., 2009b, 2010) ซึ่งเป็นส่วนประกอบสำคัญของระบบลิมบิกและเชื่อว่ามีบทบาทสำคัญในกระบวนการสร้างแรงจูงใจและให้รางวัล การศึกษาเหล่านี้เผยให้เห็นว่าออกซิโทซินมีส่วนร่วมในวงจรประสาท ซึ่งรวมถึงสารสื่อประสาทอื่นๆ เช่น โดปามีนและกรดกลูตามิก และบริเวณสมองอื่นๆ นอกเหนือจากนิวเคลียสพาราเวนทริคูลาร์ เช่น บริเวณเวนทรัลเทกเมนทัล นิวเคลียสแอคคัมเบนส์ ฮิปโปแคมปัส และบริเวณอื่นๆ ที่ยังไม่ได้รับการระบุ วงจรเหล่านี้มีแนวโน้มที่จะเป็นตัวกลางในการทำงานร่วมกันระหว่างระบบโดปามีนในระบบเมโซลิมบิกและระบบอินเซอร์โต-ไฮโปทาลามิก และมีบทบาทไม่เพียงแต่ในระยะการบรรลุผลของพฤติกรรมทางเพศของเพศชาย (เช่น การแข็งตัวของอวัยวะเพศและการร่วมเพศ) แต่ยังรวมถึงแรงจูงใจทางเพศและการเร้าอารมณ์ทางเพศด้วย ดังนั้นจึงเป็นพื้นฐานทางประสาทที่สามารถอธิบายคุณสมบัติด้านแรงจูงใจและรางวัลของกิจกรรมทางเพศได้
2 ออกซิโตซินมีอิทธิพลต่อการแข็งตัวของอวัยวะเพศชายโดยทำหน้าที่ในพื้นที่สมองที่แตกต่างกัน
2.1 นิวเคลียส paraventricular ของมลรัฐ
ดังที่ได้กล่าวไว้ข้างต้นนิวเคลียส paraventricular ของ hypothalamus ในไม่ช้าก็ถูกระบุว่าเป็นพื้นที่สมองที่สำคัญที่สุดสำหรับผลกระทบของการแข็งตัวของอุ้ง เมื่อฉีดเพียงข้างเดียวในนิวเคลียสนี้ออกซิโตซินจะถูกใช้งานในขนาดที่ต่ำที่สุดเท่ากับ 3 ng (3 pmol) (Melis et al., 1986) จากการศึกษาความสัมพันธ์ระหว่างโครงสร้างและกิจกรรมพบว่าการแข็งตัวของอวัยวะเพศชายเกิดจากอุ้งเชิงกราน oxytocin โดยไกล่เกลี่ยร่วมกับ Ca2 + การไหลเข้าของเซลล์ประสาทของเซลล์ประสาท oxytocinergic ที่ยื่นออกไปในพื้นที่สมอง ไนตริกออกไซด์โดยการทำหน้าที่เป็นผู้ส่งสารในเซลล์ด้วยกลไกที่ไม่ทราบสาเหตุ (ไม่เกี่ยวข้องกับ guanylate cyclase) นำไปสู่การกระตุ้นการทำงานของเซลล์ประสาท oxytocinergic ที่ยื่นไปที่ไขสันหลังและพื้นที่สมองส่วนนอกพิเศษทำให้เกิดการแข็งตัวของอวัยวะเพศชาย (รูปที่ 1) ด้านล่างและ Argiolas และ Melis, 1995, 2004, 2005 และการอ้างอิงในนั้น) ความสามารถของออกซิโตซินในการกระตุ้นเซลล์ประสาทของตัวเอง
รูปที่ 1 (MISSING) แผนผังแสดงของเซลล์ประสาท oxytocinergic ซึ่งเกิดขึ้นในนิวเคลียส paraventricular ของมลรัฐและโครงการไปยังพื้นที่สมองพิเศษ hypothalamic เช่นเส้นประสาทไขสันหลัง, VTA, ฮิปโปแคมปัส, amygdala ฯลฯ การเปิดใช้งานของเซลล์ประสาทเหล่านี้โดย hypothalamus โดปามีน, กรดอะมิโนที่กระตุ้น, ตัวออกซิโตซิน, เปปไทด์แบบเฮกซาโลซินและเปปไทด์ที่ได้จาก VGF นำไปสู่การแข็งตัวของอวัยวะเพศชายซึ่งสามารถลดลงและ / หรือยกเลิกได้โดยการกระตุ้นการรับ GABAergic, opioid และ cannabinoid การเปิดใช้งานของเซลล์ประสาท oxytocinergic เป็นรองการเปิดใช้งานของไนตริกออกไซด์ - synthase ที่มีอยู่ในเซลล์ประสาทเหล่านี้ แท้จริงแล้วไนตริกออกไซด์ภายนอกเกิดขึ้นจากการกระตุ้นของโดปามีน, กรดอะมิโน excitatory หรือตัวรับออกซิโตซินหรือไนตริกออกไซด์ภายนอก, ซึ่งมาจากผู้บริจาคไนตริกออกไซด์ที่ถูกส่งโดยตรงไปยังนิวเคลียส paraventricular การกระตุ้นของ cyclase guanylate นี่เป็นสาเหตุที่ทำให้เกิดการปลดปล่อยออกซิโตซินในไขสันหลังและในบริเวณสมองที่มีความผิดปกติ รายละเอียดบางอย่างเกี่ยวกับกลไกซึ่งออกซิโตซินก่อให้เกิดการแข็งตัวของอวัยวะเพศชายเมื่อถูกปล่อยออกมาในพื้นที่เหล่านี้เช่น VTA, subiculum หน้าท้องและ amygdala มีการอธิบายไว้ในส่วนของสมองตามลำดับ ที่นี่ออกซิโตซินทำหน้าที่รับของมันเองและเพิ่มการผลิต NO ซึ่งนำไปสู่การแข็งตัวของอวัยวะเพศชายที่พบใน PVN อย่างไรก็ตามที่แปรปรวนกับ PVN ในหาง VTA NO เปิดใช้งาน cyclase guanylate สิ่งนี้ทำให้เกิดการเพิ่มขึ้นของความเข้มข้น cGMP ที่นำไปสู่การกระตุ้นการทำงานของเซลล์ประสาทโดปามีน ใน VS NO จะเปิดใช้งานเซลล์ประสาทกลูตามาเทอจิคที่ฉายไปยังพื้นที่ที่มีฮิบโปแคมป์เสริมรวมถึง VTA กรดกลูตามิกใน VTA จะกระตุ้นเซลล์ประสาทโดปามินจิค dopaminergic เมื่อพบกับ oxytocin กลไกที่คล้ายกับที่อธิบายไว้ข้างต้นมีแนวโน้มที่จะทำงานด้วยเช่นกันเมื่อการแข็งตัวของอวัยวะเพศชายเกิดขึ้นในบริบททางสรีรวิทยากล่าวคือเมื่อหนูเพศผู้วางอยู่ในที่ที่มีหญิงรับเชื้อที่ไม่สามารถเข้าถึงได้ (เช่น
การค้นพบว่า มีออกซิโทซินอยู่ในนิวเคลียสพาราเวนทริคูลาร์ได้รับการสนับสนุนจากการศึกษาที่แสดงให้เห็นว่า: (1) มีตัวรับออกซิโทซินอยู่ในนิวเคลียสไฮโปทาลามัสนี้ (Freund-Mercier et al., 1987; Freund-Mercier and Stoeckel, 1995); (2) ออกซิโทซินช่วยกระตุ้นการหลั่งของตัวเองทั้งในหลอดทดลองและในร่างกาย (Freund-Mercier and Richard, 1981, 1984; Moos et al., 1984); และ(3) ออกซิโทซินกระตุ้นเซลล์ประสาทของตัวเองโดยการออกฤทธิ์ในนิวเคลียสพาราเวนทริคูลาร์ (Yamashita et al., 1987) นอกจากนี้ ยังมีการระบุไซแนปส์ออกซิโทซิเนอร์จิกที่ส่งผลต่อเซลล์ประสาทออกซิโทซิเนอร์จิกขนาดใหญ่ในนิวเคลียสพาราเวนทริคูลาร์และซูพราออปติกของไฮโปทาลามัสด้วย (Theodosis, 1985) สุดท้าย การทำลายเซลล์ประสาทออกซิโทซินในระบบประสาทส่วนกลางด้วยการทำลายด้วยไฟฟ้าหรือสารเคมีที่ทำให้เกิดพิษต่อเซลล์ประสาทในนิวเคลียสพาราเวนทริคูลาร์ ซึ่งทำให้ปริมาณออกซิโทซินในระบบประสาทส่วนกลางและไขสันหลังหมดไปอย่างสมบูรณ์ ไม่เพียงแต่จะทำให้ฤทธิ์กระตุ้นการแข็งตัวของอวัยวะเพศของออกซิโทซินหายไปเท่านั้น แต่ยังทำให้การแข็งตัวของอวัยวะเพศที่เกิดจากยาและการแข็งตัวที่ไม่เกิดจากการสัมผัสลดลงด้วย (ดูด้านล่างและ Argiolas et al., 1987a,b; Liu et al., 1997 และเอกสารอ้างอิงในนั้น) ผลลัพธ์ที่คล้ายคลึงกับที่พบจากการทำลายในนิวเคลียสพาราเวนทริคูลาร์นั้น พบได้จากการใช้สารต้านตัวรับออกซิโทซินที่มีประสิทธิภาพและเลือกจำเพาะสูง อันที่จริง สารประกอบเหล่านี้ที่ฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ในปริมาณระดับนาโนกรัม สามารถป้องกันการแข็งตัวของอวัยวะเพศที่เกิดจากออกซิโทซินได้อย่างสมบูรณ์ ในขณะที่เมื่อให้เข้าไปในโพรงสมองด้านข้าง จะไม่เพียงแต่ป้องกันการแข็งตัวของอวัยวะเพศที่เกิดจากออกซิโทซินเองเท่านั้น แต่ยังป้องกันการแข็งตัวของอวัยวะเพศที่เกิดจากยา (ดูหัวข้อที่ 3 ด้านล่าง และ Argiolas และ Melis, 1995, 2004, 2005 และเอกสารอ้างอิงในนั้น) และการแข็งตัวของอวัยวะเพศที่ไม่เกิดจากการสัมผัส (Melis et al., 1999a) และยิ่งไปกว่านั้น ยังมีประสิทธิภาพอย่างมากในการยับยั้งพฤติกรรมการผสมพันธุ์ของหนูตัวผู้ที่มีศักยภาพทางเพศ (Argiolas et al., 1988) ยิ่งไปกว่านั้น การมีปฏิสัมพันธ์ทางเพศจะเพิ่ม FOS ซึ่งเป็นผลิตภัณฑ์ของยีน c-fos ในเซลล์ประสาทออกซิโทซินเนอร์จิกพาราเวนทริคูลาร์ที่ส่งไปยังไขสันหลังซึ่งเกี่ยวข้องกับการควบคุมการแข็งตัวของอวัยวะเพศ (ดู Witt และ Insel, 1994 และเอกสารอ้างอิงในนั้น) สุดท้ายนี้ ภาวะเสื่อมสมรรถภาพทางเพศ (เช่น ความไม่สามารถของหนูตัวผู้ที่โตเต็มวัยในการผสมพันธุ์กับหนูตัวเมียที่พร้อมรับการผสมพันธุ์ซึ่งได้รับการกระตุ้นด้วยเอสโตรเจนและโปรเจสเตอโรน) ยังพบว่ามีความสัมพันธ์กับระดับ mRNA ของออกซิโทซินและไนตริกออกไซด์ซินเทสในระดับต่ำในนิวเคลียสพาราเวนทริคูลาร์ของไฮโปทาลามัสในหนูตัวผู้ด้วย (Benelli et al., 1995; Arletti et al., 1997) (สำหรับการทบทวนงานวิจัยเหล่านี้อย่างละเอียด โปรดดู Argiolas, 1999; Argiolas and Melis, 2004, 2005)
2.2 พื้นที่หน้าท้องหน้าท้องที่
บริเวณเวนทรัลเทกเมนทัล (Ventral tegmental area) เพิ่งถูกค้นพบเมื่อไม่นานมานี้ว่าเป็นบริเวณในสมองที่ออกซิโทซินกระตุ้นการแข็งตัวของอวัยวะเพศชาย บริเวณนี้ประกอบด้วยปลายประสาทออกซิโทซินที่มาจากนิวเคลียสพาราเวนทริคูลาร์ (paraventricular nucleus) และตัวรับออกซิโทซิน (Freund-Mercier et al., 1987; Vaccari et al., 1998) กล่าวโดยละเอียดคือ พบว่าออกซิโทซินสามารถกระตุ้นการแข็งตัวของอวัยวะเพศชายได้เมื่อฉีดเข้าไปในบริเวณเวนทรัลเทกเมนทัลด้านเดียวในส่วนท้าย (caudal tegmental area) แต่ไม่ใช่ในส่วนหน้า (rostral ventral tegmental area ) ในลักษณะที่ขึ้นอยู่กับปริมาณยา (Melis et al., 2007) ปริมาณยาที่ออกฤทธิ์นั้นสูงกว่าปริมาณที่จำเป็นเมื่อฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ และคล้ายคลึงกับปริมาณที่ทำให้เกิดการแข็งตัวของอวัยวะเพศเมื่อฉีดเข้าไปในเวนทรัลซับบิคูลัมของฮิปโปแคมปัสหรือเข้าไปในนิวเคลียสคอร์ติคัลโพสเทอโรมีเดียลของอะมิกดาลา (ดูด้านล่าง) เห็นได้ชัดว่าผลในการกระตุ้นการแข็งตัวของอวัยวะเพศนั้นเกิดจากการกระตุ้นเซลล์ประสาทโดปามีนในระบบเมโซลิมบิกที่ส่งสัญญาณไปยังเปลือกของนิวเคลียสแอคคัมเบนส์ ซึ่งจะไปกระตุ้นเส้นทางประสาทที่ยังไม่ทราบแน่ชัดที่ส่งสัญญาณไปยังเซลล์ประสาทโดปามีนในระบบไฮโปทาลามัสที่ไม่แน่นอน ซึ่งส่งผลต่อเซลล์ประสาทออกซิโทซิเนอร์จิกในพาราเวนทริคูลาร์ที่ทำหน้าที่ควบคุมการแข็งตัวของอวัยวะเพศ (Melis et al., 2007, 2009a)
สำหรับกลไกที่ออกซิโทซินกระตุ้นการส่งสัญญาณประสาทโดปามีนในบริเวณเวนทรัลเทกเมนทัลนั้น ข้อมูลที่มีอยู่บ่งชี้ว่าออกซิโทซินกระตุ้นตัวรับออกซิโทซินที่อยู่ในเซลล์ประสาทโดปามีนเมโซลิมบิก ซึ่งจะเพิ่มการไหลเข้าของ Ca2+ ภายในเซลล์ประสาทโดปามีน ส่งผลให้เอนไซม์ไนตริกออกไซด์ซินเทสทำงาน (Succu et al., 2008) ซึ่งแตกต่างจากนิวเคลียสพาราเวนทริคูลาร์ (ดูหัวข้อที่ 3 ด้านล่าง) ไนตริกออกไซด์จะไปกระตุ้นเอนไซม์กัวนิเลตไซเคลส ทำให้ความเข้มข้นของไซคลิก GMP เพิ่มขึ้น ตามกลไกนี้ การฉีด d(CH2)5Tyr(Me)2-Orn8-vasotocin ซึ่งเป็นสารต้านออกซิโทซินที่มีฤทธิ์แรง หรือ S-methyl-thio-l-citrulline ซึ่งเป็นสารยับยั้งเอนไซม์ neuronal nitric oxide-synthase ที่มีฤทธิ์แรง เข้าไปในบริเวณ caudal ventral tegmental area ก่อนฉีดออกซิโทซิน จะทำให้การแข็งตัวของอวัยวะเพศชายและการเพิ่มขึ้นของความเข้มข้นของโดปามีนนอกเซลล์ในส่วน shell ของ nucleus accumbens ที่เกิดจากออกซิโทซินนั้นหายไป นอกจากนี้ 8-bromo-cyclic GMP ซึ่งเป็นอะนาล็อกของ cyclic GMP ที่ทนต่อ phosphodiesterase และมีฤทธิ์กระตุ้นการแข็งตัวของอวัยวะเพศชายเมื่อฉีดเข้าไปในบริเวณ caudal ventral tegmental area และเพิ่มความเข้มข้นของโดปามีนนอกเซลล์ในส่วนเปลือกของนิวเคลียสแอคคัมเบนส์ เช่นเดียวกับที่พบเมื่อฉีดออกซิโทซินเข้าไปในบริเวณ caudal ventral tegmental area (Succu et al., 2008; Melis et al., 2009a) (ดูรูปที่ 2 ประกอบ)
ตามกลไกนี้เสมอ ฮาโลเพอริดอล ซึ่งเป็นสารต้านตัวรับโดปามีน D2 ที่มีฤทธิ์แรง เมื่อฉีดเข้าไปในส่วนเปลือกของนิวเคลียสแอคคัมเบนส์ จะช่วยลดการแข็งตัวของอวัยวะเพศที่เกิดจากออกซิโทซินซึ่งฉีดเข้าไปในบริเวณเวนทรัลเทกเมนทัล (Melis et al., 2007) กลไกข้างต้นยังได้รับการสนับสนุนจากการศึกษาด้วยวิธีอิมมูโนฟลูออเรสเซนซ์แบบคู่ ซึ่งแสดงให้เห็นว่าเส้นใยออกซิโทซินกระทบกับเซลล์ประสาทโดปามีนในบริเวณเวนทรัลเทกเมนทัลส่วนท้าย ซึ่งก่อนหน้านี้ถูกติดฉลากด้วยสารติดตามย้อนกลับฟลูออโรโกลด์ที่ฉีดเข้าไปในส่วนเปลือกของนิวเคลียสแอคคัมเบนส์ (Melis et al., 2007; Succu et al., 2008) การกระตุ้นของเซลล์ประสาทโดปามีนและตัวรับโดปามีนในนิวเคลียสแอคคัมเบนส์ นำไปสู่การกระตุ้นเส้นทางประสาทที่ยังไม่ได้รับการระบุ ซึ่งกระตุ้นเซลล์ประสาทโดปามีนในไฮโปทาลามัสให้ปล่อยโดปามีนในนิวเคลียสพาราเวนทริคูลาร์ ส่งผลให้เซลล์ประสาทออกซิโทซินที่ส่งสัญญาณไปยังไขสันหลังถูกกระตุ้นและทำให้เกิดการแข็งตัวของอวัยวะเพศชาย (ดูข้างต้นและ Melis et al., 2007; Succu et al., 2007, 2008) ที่จริงแล้ว การฉีดออกซิโทซินเข้าไปในบริเวณเทกเมนทัลด้านล่างส่วนท้ายในปริมาณที่ทำให้เกิดการแข็งตัวของอวัยวะเพศชาย จะเพิ่มความเข้มข้นของโดปามีนนอกเซลล์ในสารละลายที่ได้จากการแยกเซลล์ ไม่เพียงแต่จากนิวเคลียสแอคคัมเบนส์เท่านั้น แต่ยังรวมถึงจากนิวเคลียสพาราเวนทริคูลาร์ด้วย (Succu et al., 2007)
2.3 ฮิปโปแคมปัส
บริเวณ CA1 ของฮิปโปแคมปัสเป็นอีกบริเวณหนึ่งในสมองที่อุดมไปด้วยเส้นใยและตัวรับออกซิโทซิน ซึ่งถูกระบุโดยการศึกษาในอดีตที่พบว่าการฉีดออกซิโทซินทำให้เกิดการแข็งตัวของอวัยวะเพศชาย (ดู Bujis, 1978; Sofroniew, 1983) อย่างไรก็ตาม แตกต่างจากนิวเคลียสพาราเวนทริคูลาร์ พบว่าออกซิโทซินในบริเวณนี้สามารถทำให้เกิดการแข็งตัวของอวัยวะเพศชายได้ก็ต่อเมื่อฉีดทั้งสองข้างและในปริมาณที่สูงกว่าที่พบว่าออกฤทธิ์ในนิวเคลียสพาราเวนทริคูลาร์ (Melis et al., 1986; Chen et al., 1992) การฉีดออกซิโทซินเข้าไปในซับบิคูลัมพบว่าไม่ได้ผลในการศึกษาในอดีตเหล่านั้น อย่างไรก็ตาม การศึกษาการฉีดขนาดเล็กที่ละเอียดถี่ถ้วนมากขึ้นในปัจจุบันนำไปสู่การระบุบริเวณหนึ่งของซับบิคูลัมด้านล่างที่การฉีดออกซิโทซินสามารถทำให้เกิดการแข็งตัวของอวัยวะเพศชายได้ในลักษณะที่ขึ้นอยู่กับปริมาณ (Melis et al., 2009b) พบว่าฤทธิ์กระตุ้นการแข็งตัวของอวัยวะเพศของออกซิโทซินที่ฉีดเข้าไปในบริเวณสมองส่วนนี้ เกิดขึ้นที่ปริมาณยาใกล้เคียงกับที่พบว่ามีฤทธิ์ในบริเวณเวนทรัลเทกเมนทัลหลังจากการฉีดเพียงข้างเดียว (Melis et al., 2007) เช่นเดียวกับที่พบในนิวเคลียสพาราเวนทริคูลาร์เห็นได้ชัดว่า ออกซิโทซินที่ฉีดเข้าไปในเวนทรัลซับบิคูลัมจะกระตุ้นการแข็งตัวของอวัยวะเพศโดยการกระตุ้นตัวรับออกซิโทซินในเซลล์ประสาทที่มีไนตริกออกไซด์ซินเทส ทำให้มีการผลิตไนตริกออกไซด์เพิ่มขึ้นไนตริกออกไซด์ทำหน้าที่เป็นสารสื่อสารระหว่างเซลล์ กระตุ้นการส่งสัญญาณประสาทของกรดกลูตามิก นำไปสู่การแข็งตัวของอวัยวะเพศชายอาจผ่านการส่งสัญญาณประสาท (กลูตาเมอร์จิก) จากซับบิคูลัมส่วนล่างไปยังบริเวณสมองนอกฮิปโปแคมปัส เพื่อปรับการทำงานของเซลล์ประสาทโดปามีนในระบบเมโซลิมบิก (เช่น บริเวณเท็กเมนทัลส่วนล่าง คอร์เทกซ์ส่วนหน้า นิวเคลียสพาราเวนทริคูลาร์) (ดูด้านล่างและ Melis, 2007, 2009b; Succu et al., 2008)
กลไกของการกระทำนี้ได้รับการสนับสนุนจากการทดลอง microdialysis ภายในสมองซึ่งแสดงให้เห็นว่าอุ้งออกฉีดเข้าไปใน subiculum หน้าท้องในปริมาณที่ทำให้เกิดการแข็งตัวของอวัยวะเพศชายเพิ่มการผลิตไนตริกออกไซด์และความเข้มข้นของกรดกลูตามิกในเซลล์นอก , 2010) และโดปามีนนอกเซลล์ในนิวเคลียส accumbens (Melis et al., 2007) การตอบสนองเหล่านี้ไม่ได้เกิดขึ้นเฉพาะกับ oxytocin receptor antagonist d (CH2) 5Tyr (Me) 2-Orn8-vasotocin, แต่โดย neuronal nitric oxide-synthase inhibitor S-methyl-thio-lcitrulline เข้าไปใน subiculum หน้าท้องไม่กี่นาทีก่อนออกซิโตซิน (Melis et al., 2010)
นอกจากนี้ สอดคล้องกับกลไกการออกฤทธิ์นี้ การกระตุ้นการส่งสัญญาณประสาทกลูตาเมตโดย NMDA ที่ฉีดเข้าไปในซับบิคูลัมส่วนล่างจะทำให้เกิดการแข็งตัวของอวัยวะเพศชาย (Melis et al., 2010) ฟีโนไทป์ของการส่งสัญญาณจากซับบิคูลัมส่วนล่าง ซึ่งทำให้เกิดการกระตุ้นเซลล์ประสาทโดปามีนในระบบเมโซลิมบิกและการเพิ่มขึ้นของโดปามีนนอกเซลล์ในนิวเคลียสแอคคัมเบนส์ ยังไม่เป็นที่ทราบแน่ชัดในปัจจุบัน อย่างไรก็ตาม เนื่องจากอาการแข็งตัวขององคชาตที่เกิดจากการฉีดออกซิโทซินเข้าไปในเวนทรัลซับบิคูลัมเกิดขึ้นพร้อมกับการเพิ่มขึ้นของกรดกลูตามิกนอกเซลล์ในไดอะไลเซตจากบริเวณเวนทรัลเทกเมนทัล แต่ไม่ใช่จากนิวเคลียสแอคคัมเบนส์ และถูกยับยั้งโดย (+)MK-801 ซึ่งเป็นสารต้านฤทธิ์แบบไม่แข่งขันที่มีศักยภาพของตัวรับกรดอะมิโนกระตุ้นชนิด NMDA (Woodruff et al., 1987) ที่ฉีดเข้าไปในบริเวณเวนทรัลเทกเมนทัล แต่ไม่ใช่ในนิวเคลียสแอคคัมเบนส์ (ดูรูปที่ 2 และ Melis et al., 2009b) จึงเป็นไปได้ว่าการฉายภาพเหล่านี้ทำให้เกิดการกระตุ้นการส่งสัญญาณประสาทกลูตาเมอร์จิกในบริเวณเวนทรัลเทกเมนทัล ซึ่งจะกระตุ้นเซลล์ประสาทโดปามีนเมโซลิมบิกที่ฉายภาพไปยังนิวเคลียสแอคคัมเบนส์ปัจจุบันยังไม่ทราบแน่ชัดว่า กรดกลูตามิกที่มีความเข้มข้นเพิ่มขึ้นในบริเวณเวนทรัลเทกเมนทัล (ventral tegmental area) หลังจากการฉีดออกซิโทซินเข้าไปในเวนทรัลซับบิคูลัม (ventral subiculum) นั้น มาจากเซลล์ประสาทที่กำเนิดในซับบิคูลัมหรือจากบริเวณสมองอื่นๆ (เช่น คอร์เทกซ์พรีฟรอนทัล) อย่างไรก็ตามการเพิ่มขึ้นของกรดกลูตามิกนี้ทำให้เกิดการกระตุ้นเซลล์ประสาทโดปามีนในระบบเมโซลิมบิก (mesolimbic dopaminergic neurons) และมีการปล่อยโดปามีนเพิ่มขึ้นในนิวเคลียสแอคคัมเบนส์ (nucleus accumbens ) การกระตุ้นตัวรับโดปามีนในบริเวณนี้จะนำไปสู่การกระตุ้นเซลล์ประสาทโดปามีนในระบบไฮโปทาลามัส (incerto-hypothalamic dopaminergic neurons) ทำให้เกิดการปล่อยโดปามีนในนิวเคลียสพาราเวนทริคูลาร์ (paraventricular nucleus) ซึ่งเป็นการกระตุ้นเซลล์ประสาทออกซิโทซินที่ส่งสัญญาณไปยังไขสันหลังและทำให้เกิดการแข็งตัวของอวัยวะเพศชาย (ดูข้างต้นและ Melis et al., 2007, 2009a; Succu et al., 2008)
2.4 ใบอ่อน
amygdala เป็นบริเวณสมองอีกอันหนึ่งที่อุดมไปด้วยเส้นใยออกซิโตซินและตัวรับ (ดู Freund-Mercier และคณะ, 1987; Vaccari et al., 1998; Uhl-Bronner และ al, 2005) ออกซิโตซินที่นี่เป็นความคิดที่จะมีส่วนร่วมในการทำงานที่แตกต่างกันจากความวิตกกังวลหน่วยความจำทางสังคมและความรู้ความเข้าใจการเรียนรู้เสริมสังคมการเห็นอกเห็นใจอารมณ์การประมวลผลใบหน้าอารมณ์และความกลัวในมนุษย์ถึงการแข็งตัวและพฤติกรรมทางเพศ (ดู Kondo et al., 1998; Dominguez et อัล, 2001; Ebner และอัล, 2005; ฮูเบอร์และอัล, 2005; โดมและอัล, 2007; Petrovic และอัล, 2008, ลีและอัล, 2009, โดนัลด์สันและยัง, 2009, Hurlemann และ Young, 2010 , 2009) อย่างไรก็ตามความสามารถของออกซิโตซินในการกระตุ้นการแข็งตัวของอวัยวะเพศชายในหนูตัวผู้เมื่อเหนี่ยวนำให้เกิดขึ้นในนิวเคลียสเยื่อหุ้มสมองด้านหลังของอะไมก์ดาลาเพิ่งค้นพบเมื่อไม่นานมานี้ (Melis et al., 2009b) การตอบสนองนี้เกิดขึ้นพร้อมกับการเพิ่มความเข้มข้นของโดปามีนในเซลล์พิเศษใน dialysate ที่ได้รับจากเปลือกของนิวเคลียส accumbens ซึ่งพบหลังจากการฉีดออกซิโตซินเข้าสู่ subiculum หน้าท้อง (Melis et al., 2b) กลไกที่ออกซิโตซินฉีดเข้าไปในนิวเคลียสเยื่อหุ้มสมอง posteromedial ของ amygdala ทำให้อวัยวะเพศชายแข็งตัวไม่เป็นที่รู้จักในขณะนี้ ข้อมูลที่มีอยู่แสดงให้เห็นว่าทั้งการแข็งตัวของอวัยวะเพศชายและการเพิ่มขึ้นของความเข้มข้นของโดปามีนในเซลล์พิเศษใน dialysate ที่ได้รับจากนิวเคลียส accumbens นั้นมีการไกล่เกลี่ยโดยการกระตุ้นการรับ oxytocinergic เนื่องจากการตอบสนองทั้งสองถูกยกเลิกโดย oxytocin receptor antagonist d (CH5) 2Tyr ฉัน) 8-Orn2009-vasotocin ฉีดเข้าไปในนิวเคลียสของ amygdala ไม่กี่นาทีก่อนออกซิโตซิน (Melis et al., XNUMXb)
ไม่ว่ากลไกใดที่ออกซิโทซินกระตุ้นในนิวเคลียสคอร์ติคัลส่วนหลังตรงกลางของอะมิกดาลา การตอบสนองทางเพศที่เกิดจากเปปไทด์จะถูกยับยั้งโดยการปิดกั้นตัวรับโดปามีนทั้งหมดด้วยซิส-ฟลูเพนทิกซอลที่ฉีดเข้าไปในเปลือกของนิวเคลียสแอคคัมเบนส์ และโดยการปิดกั้นตัวรับ NMDA ด้วย (+)MK-801 ที่ฉีดเข้าไปในบริเวณเท็กเมนทัลด้านล่าง แต่ไม่ใช่ในนิวเคลียสแอคคัมเบนส์ ดังที่พบในการแข็งตัวของอวัยวะเพศที่เกิดจากออกซิโทซินที่ฉีดเข้าไปในซับบิคูลัมด้านล่าง (Melis et al., 2009b) สิ่งนี้ชี้ให้เห็นว่าออกซิโทซินที่ฉีดเข้าไปในนิวเคลียสส่วนหลังตรงกลางของอะมิกดาลาจะกระตุ้นการส่งสัญญาณประสาทของกรดกลูตามิกในบริเวณเท็กเมนทัลด้านล่าง ซึ่งจะทำให้เกิดการกระตุ้นเซลล์ประสาทโดปามีนในระบบเมโซลิมบิก นำไปสู่การแข็งตัวของอวัยวะเพศจากการศึกษาที่แสดงให้เห็นถึงเส้นทางประสาทที่เชื่อมต่อระหว่างนิวเคลียสของอะมิกดาลากับซับบิคูลัมส่วนล่าง (Canteras et al., 1995; French and Totterdell, 2003) ผลการค้นพบเหล่านี้ทำให้เกิดความเป็นไปได้ว่าอาจมีปฏิสัมพันธ์ระหว่างสองบริเวณของสมองนี้ แม้ว่าจะมีการอธิบายถึงเส้นทางโดยตรงจากอะมิกดาลาไปยังนิวเคลียสแอคคัมเบนส์หรือไปยังบริเวณเท็กเมนตัมส่วนล่างแล้วก็ตาม (Kelley and Domesick, 1982; Witter, 2006)
2.5 ไขสันหลัง
เส้นประสาทไขสันหลังเป็นอีกส่วนหนึ่งของระบบประสาทส่วนกลางที่มีเส้นใยและตัวรับ oxytocinergic (Freund-Mercier et al., 1987; Uhl-Bronner และ al, 2005) ซึ่ง oxytocin ทำให้เกิดการแข็งตัวของอวัยวะเพศชาย (Tang et al., 1998) ; Veronneau-Longueville และคณะ, 1999; Giuliano และ Rampin, 2000; Giuliano et al., 2001) ดังที่ได้กล่าวไว้ข้างต้นเส้นใย oxytocinergic เหล่านี้เกิดขึ้นในนิวเคลียส paraventricular ของ hypothalamus และนำไปสู่เส้นทางสู่การควบคุมเซลล์ประสาทอัตโนมัติเกี่ยวกับกระดูกสันหลังที่อยู่ตรงกลาง อันที่จริงแล้วเส้นใยเหล่านี้มีการติดต่อกันใน synaptic horn หลัง preganglionic sympathetic และ parasympathetic คอลัมน์ของเซลล์ใน thoraco-lumbar และ lumbo-sacral ผืนที่มีเส้นประสาทไขสันหลังที่เป็นอันตรายต่อโพรงโพรงสมอง corpora (Marson และ McKenna, 1996; Giuliano และ Rampin, 2000 Giuliano; , 2001) รายชื่อผู้ติดต่อ synaptic เหล่านี้ถูกแสดงให้เห็นโดยการติดฉลากของเซลล์ประสาทไขสันหลังที่มีต้นกำเนิดในอวัยวะเพศและถึงเส้นประสาทไขสันหลังที่มี tracers ถอยหลังเข้าคลองที่เฉพาะเจาะจงฉีดเข้าไปใน corpora โพรงรวมกับคู่ immuno- เรืองแสงและกล้องจุลทรรศน์เลเซอร์ confocal (Tang et al., 1998; Veronneau-Longueville) et al., 1999) ในการศึกษาเหล่านี้พบว่าในหนูเพศผู้ที่ได้รับยาฉีดยาทางช่องปากของยาออกซิโตซินที่ lumbo-sacral แต่ไม่ได้อยู่ในระดับ thoraco-lumbar ความดันภายในหลอดเลือดจะเพิ่มขึ้นในลักษณะที่ขึ้นกับขนาดของยา ผลกระทบเหล่านี้ถูกยกเลิกโดยการปิดล้อมของ oxytocinergic receptor ด้วย d (CH2) 5Tyr (Me) 2-Orn8-vasotocin และตามส่วนของกระดูกเชิงกราน (Giuliano และ Rampin, 2000; Giuliano et al, 2001; ผลลัพธ์เหล่านี้แสดงให้เห็นว่าอุออกซิซินที่ทำหน้าที่ที่ไขสันหลัง lumbo- ศักดิ์สิทธิ์เพิ่มความดัน intracavernous และแนะนำ oxytocin ที่ปล่อยออกมาในระหว่างการเปิดใช้งานทางสรีรวิทยาของนิวเคลียส paraventricular เป็นกระตุ้นที่มีศักยภาพของเซลล์ประสาทโปร erectile กระดูกสันหลัง ที่น่าสนใจเซลล์ประสาทไขสันหลัง pro-erectile ซึ่ง oxytocin ทำหน้าที่ออกแรง pro-erectile effect นั้นยังได้รับการติดต่อจากเซลล์ประสาท serotoninergic ที่มีต้นกำเนิดในนิวเคลียส paragigantocellularis ของการก่อตัวของตาข่ายไขกระดูก (Marson และ McKenna, 1992 Tang; ., 1998) การทำลายของเซลล์ประสาท serotoninergic เหล่านี้ช่วยในการพุ่งออกมาและการตอบสนองอวัยวะเพศชายในหนูเพศชาย (Marson and McKenna, 1992; Yells et al., 1992) เนื่องจากยาที่กระตุ้นให้ผู้รับ 5HT2C เอื้อต่อการแข็งตัวของอวัยวะเพศชายเมื่อได้รับภาวะ intracerebroventricularly ในขณะที่ XAG ไม่ใช่ยาลดไข้ (ไม่ได้อยู่ในนิวเคลียส paraventricular และยาที่ขัดขวางตัวรับ 5HT2C นั้นยังลด dopamine agonist และ oxytocin เห็น Stancampiano et al., 5 และการอ้างอิงในนั้น, มันยังได้รับการแนะนำว่า oxytocin ช่วยอำนวยความสะดวกในการกระทำของตัวรับ 2HT1994C แบบ pro-erectile ที่ระดับของเส้นประสาทไขสันหลัง lumbo-sacral (Stancampiano et al., 5) หรืออีกทางหนึ่ง oxytocin อาจมีผลต่อกิจกรรมของเซลล์ประสาท serotoninergic กระดูกสันหลังโดยการกระทำโดยตรงในนิวเคลียส paragigantocellularis นิวเคลียสซึ่งเซลล์เหล่านี้เกิดขึ้น (ดู Stancampiano et al., 1994) สอดคล้องกับความเป็นไปได้นี้ ได้มีการอธิบายถึงเส้นทางออกซิโทซินเนอร์จิกที่มีต้นกำเนิดจากนิวเคลียสพาราเวนทริคิวลาร์และไปถึงนิวเคลียสพาราจิแกนโตเซลลูลาริสของการก่อตัวของเรติคูลาร์ในเมดัลลาออบลองกาตา (Bancila et al., 2002) และการกระตุ้นตัวรับ 5HT2C ที่ตั้งอยู่ในไขสันหลังที่อยู่ปลายกระแสไปยังตัวรับโดปามีนและออกซิโทซินถือเป็นกลไกทั่วไปของผลส่งเสริมการแข็งตัวของสารประกอบเหล่านี้และแม้แต่ของเปปไทด์ ACTH-MSH (Kimura et al., 2008)
3 ปฏิกิริยาระหว่างออกซิโตซินโดปามีนและกรดกลูตามิกในระบบประสาทส่วนกลางและการแข็งตัวของอวัยวะเพศชาย
ดังที่ได้กล่าวไว้ในหัวข้อที่ 1 เซลล์ประสาทออกซิโทซินทั้งหมดในระบบประสาทส่วนกลางมีต้นกำเนิดมาจากนิวเคลียสพาราเวนทริคูลาร์และโครงสร้างโดยรอบ การทำงานของเซลล์ประสาทเหล่านี้อยู่ภายใต้การควบคุมของสารสื่อประสาทและ/หรือนิวโรเปปไทด์ต่างๆในบรรดาสารที่ได้รับการศึกษามากที่สุดในระดับพาราเวนทริคูลาร์ ได้แก่ โดปามีน กรดกลูตามิก กรดแกมมาอะมิโนบิวทิริก (GABA) ไนตริกออกไซด์ เอนโดแคนนาบินอยด์ เปปไทด์โอปิออยด์ เปปไทด์ที่กระตุ้นการหลั่งฮอร์โมนการเจริญเติบโต เปปไทด์ที่เกี่ยวข้องกับ VGF และออกซิโทซินเองโดปามีน กรดกลูตามิก เปปไทด์ที่กระตุ้นการหลั่งฮอร์โมนการเจริญเติบโต เปปไทด์ที่ได้จาก VGF และออกซิโทซิน เป็นสารกระตุ้น เช่น สารประกอบเหล่านี้และสารกระตุ้นตัวรับของพวกมันช่วยให้องศาการแข็งตัวของอวัยวะเพศดีขึ้นเมื่อฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ ในขณะที่ GABA เปปไทด์โอปิออยด์ และเอนโดแคนนาบินอยด์ เป็นสารยับยั้ง เช่น สารประกอบเหล่านี้หรือสารกระตุ้นตัวรับของพวกมันยับยั้งการแข็งตัวของอวัยวะเพศ (ดู Meisel และ Sachs, 1994; Witt และ Insel, 1994; Argiolas และ Melis, 1995, 2004, 2005; Giuliano และ Rampin, 2000, 2004; McKenna, 2000; Andersson, 2001; Hull et al., 2002)
หลักฐานการทดลองหลายเส้นชี้ให้เห็นว่าเซลล์ประสาท oxytocinergic เหล่านี้และสารสื่อประสาทและสารสื่อประสาทข้างต้นมีส่วนร่วมในการควบคุมการทำงานของอวัยวะเพศและพฤติกรรมทางเพศในบริบททางสรีรวิทยาที่แตกต่างกัน ยิ่งกว่านั้นการออกซิโทซินที่ถูกปล่อยออกมาในพื้นที่สมองส่วนเกินพิเศษเช่นพื้นที่หน้าท้อง, ฮิบโปแคมปัสและภูมิภาค, อะมิกดาลาและไขสันหลังอาจมีผลต่อการทำงานของเซลล์ประสาทเหล่านั้น ในขณะนี้เซลล์ประสาทเดียวที่สำคัญสำหรับการแข็งตัวของอวัยวะเพศชายซึ่ง oxytocinergic synapses impinge ระบุด้วยความมั่นใจเป็นเซลล์ของเซลล์ประสาทโดปามีนของ mesolimbic ของบริเวณหน้าท้องของหางตาที่ยื่นออกไปสู่เปลือกของนิวเคลียส accumbens (Melis et al., 2007) ; Succu et al., 2008) และเซลล์ประสาทไขสันหลังที่ยื่นออกมาจากทางเดิน lumbo-sacral ไปยัง cavernous corpora (ดู Giuliano and Rampin, 2000; Giuliano et al., 2001) (ดูที่ส่วน 2.2 และ 2.5) . แท้จริงแล้วแม้ว่า oxytocinergic synapses และตัวรับจะถูกระบุใน subiculum หน้าท้อง, amygdala และไขสันหลัง, พื้นที่ที่มีความสำคัญสำหรับการสร้างอวัยวะเพศชาย (ดูด้านบน), ในพื้นที่เหล่านี้ชนิดของสารสื่อประสาท / s อยู่ในเซลล์ประสาท ซึ่งปลายประสาท oxytocinergic ปะทะยังไม่ทราบ
ส่วนนี้ของบทวิจารณ์จะสรุปโดยย่อถึงวรรณกรรมล่าสุดเกี่ยวกับกลไกที่อยู่เบื้องหลังผลกระตุ้นการแข็งตัวของอวัยวะเพศของออกซิโทซินที่ฉีดเข้าไปในบริเวณเทกเมนทัลส่วนท้ายของสมองส่วนหน้า (caudal ventral tegmental area) บริเวณซับบิคูลัมส่วนหน้าของฮิปโปแคมปัส (ventral subiculum of the hippocampus) และในไขสันหลัง โดยให้ความสนใจเป็นพิเศษกับปฏิกิริยาของเปปไทด์กับโดปามีนและกรดกลูตามิกในบริเวณเหล่านี้ และบทบาทที่ปฏิกิริยานี้อาจมีต่อการควบคุมการทำงานของอวัยวะเพศจากส่วนกลาง ก่อนอื่นจะมีการสรุปโดยย่อเกี่ยวกับผลของโดปามีนและกรดกลูตามิกต่อเซลล์ประสาทออกซิโทซินในนิวเคลียสพาราเวนทริคูลาร์ ซึ่งมีบทบาทสำคัญในการทำงานของอวัยวะเพศเช่นกัน เพื่อให้ผู้อ่านตระหนักถึงสถานะเริ่มต้นของการวิจัยในสาขานี้ เนื่องจากงานวิจัยเหล่านี้ได้รับการทบทวนอย่างละเอียดแล้ว (ดู Argiolas และ Melis, 1995, 2004, 2005; Melis และ Argiolas, 2003) ในกรณีนี้เช่นกัน ผลลัพธ์ล่าสุดที่ชี้ให้เห็นถึงบทบาทสำคัญของทั้งการเชื่อมโยงระหว่างโดปามีนและออกซิโทซิน และการเชื่อมโยงระหว่างกรดกลูตามิกและออกซิโทซิน ไม่เพียงแต่ในสมรรถภาพทางเพศ (การแข็งตัวของอวัยวะเพศและการร่วมเพศ) แต่ยังรวมถึงการกระตุ้นทางเพศและแรงจูงใจทางเพศด้วย
3.1 การทำงานร่วมกันของ Dopamine-oxytocin ในนิวเคลียส paraventricular
ความสามารถของสารกระตุ้นโดปามีนในการเหนี่ยวนำให้เกิดการแข็งตัวของอวัยวะเพศชายโดยการกระตุ้นเซลล์ประสาทออกซิโทซินในส่วนกลางนั้นได้รับการเสนอแนะทันทีหลังจากที่ค้นพบว่าอะโพมอร์ฟีนเหนี่ยวนำให้เกิดการแข็งตัวของอวัยวะเพศชายเมื่อฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ (Melis et al., 1987) เมื่อพบว่าสารต้านตัวรับออกซิโทซิน d(CH2)5Tyr(Me)2-Orn8-vasotocin ที่ฉีดเข้าไปในโพรงสมอง (icv) สามารถลดการแข็งตัวของอวัยวะเพศชายที่เกิดจากออกซิโทซินที่ให้ทาง icv และอะโพมอร์ฟีนที่ให้ทางใต้ผิวหนังได้เกือบหมด (Argiolas et al., 1987b) ผลลัพธ์เหล่านี้ตามมาด้วยผลการศึกษาอื่นๆ ที่แสดงผลลัพธ์ที่คล้ายคลึงกันเมื่อให้ d(CH2)5Tyr(Me)2-Orn8-vasotocin ทางช่องโพรงสมอง และให้ apomorphine โดยตรงเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ (Melis et al., 1989b) ซึ่งนำไปสู่ข้อเสนอแนะว่าสารกระตุ้นโดปามีนทำให้เกิดการแข็งตัวของอวัยวะเพศชายโดยการกระตุ้นเซลล์ประสาทออกซิโทซิเนอร์จิกในพาราเวนทริคูลาร์ที่ส่งสัญญาณไปยังบริเวณสมองนอกไฮโปทาลามัส และโดยเฉพาะอย่างยิ่งไปยังไขสันหลัง (ดู Argiolas และ Melis, 1995, 2004, 2005) สอดคล้องกับสมมติฐานนี้ ในหนูทดลองที่ถูกวางยาสลบ พบว่าการปิดกั้นตัวรับออกซิโทซินบริเวณกระดูกสันหลังส่วนเอวและกระดูกเชิงกรานโดยสารต้านตัวรับออกซิโทซินที่ไม่ใช่เปปไทด์ สามารถยับยั้งการเพิ่มขึ้นของความดันภายในโพรงองคชาตที่เกิดจากอะโพมอร์ฟีน ซึ่งเป็นสารกระตุ้นโดปามีน แสดงให้เห็นถึงหลักฐานว่ามีเส้นทางออกซิโทซินจากพาราเวนทริคูโลไปยังไขสันหลังที่เกี่ยวข้องกับการแข็งตัวขององคชาต (Baskerville et al., 2009)
การศึกษาที่มุ่งเน้นการระบุตัวรับโดปามีนที่รับผิดชอบต่อการกระตุ้นการแข็งตัวของอวัยวะเพศชาย พบว่าในนิวเคลียสพาราเวนทริคูลาร์ สารกระตุ้นตัวรับโดปามีนสามารถกระตุ้นการแข็งตัวของอวัยวะเพศชายได้โดยการออกฤทธิ์ต่อตัวรับโดปามีนในกลุ่ม D2เช่นเดียวกับที่พบเมื่อให้สารกระตุ้นตัวรับโดปามีนทางระบบ (ดู Melis et al., 1987; Eaton et al., 1991; Melis and Argiolas, 1995a) ดังนั้น อะโพมอร์ฟีน ซึ่งเป็นตัวกระตุ้นตัวรับ D1/D2 แบบผสมที่มีฤทธิ์แรง และควินพิโรล ซึ่งเป็นตัวกระตุ้นตัวรับ D2 แบบเลือกเฉพาะที่มีฤทธิ์แรง แต่ไม่ใช่ SKF 38393 ซึ่งเป็นตัวกระตุ้นตัวรับ D1 แบบเลือกเฉพาะ เมื่อฉีดเข้าไปในนิวเคลียสของไฮโปทาลามัสนี้ พบว่าสามารถกระตุ้นการแข็งตัวของอวัยวะเพศชายได้ในลักษณะที่ขึ้นอยู่กับปริมาณยา และการตอบสนองทางเพศที่เกิดจากตัวกระตุ้นตัวรับ D2 เหล่านี้ถูกยับยั้งโดยตัวต้านตัวรับ D2 เช่น ฮาโลเพอริดอลและแอล-ซัลพิไรด์ แต่ไม่ใช่โดย SCH 23390 ซึ่งเป็นตัวต้านตัวรับ D1 แบบเลือกเฉพาะ (Melis et al., 1987) ความสามารถของอะโพมอร์ฟีนในการกระตุ้นการแข็งตัวของอวัยวะเพศชายเมื่อฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ได้รับการยืนยันโดยการศึกษาทางไกลที่แสดงให้เห็นว่าสารกระตุ้นโดปามีนที่ให้เข้าไปในนิวเคลียสพาราเวนทริคูลาร์สามารถเพิ่มความดันภายในโพรงอวัยวะเพศในหนูตัวผู้ที่ตื่นตัวโดยไม่เปลี่ยนแปลงความดันโลหิตทั่วร่างกาย (Chen et al., 1999; Giuliano and Allard, 2001) เช่นเดียวกับที่พบหลังจากการฉีดเข้าสู่ระบบทั่วร่างกาย (Bernabè et al., 1999) การศึกษาเหล่านี้ยังยืนยันบทบาทสำคัญของตัวรับ D2 เนื่องจากโดยทั่วไปพบว่าสารกระตุ้นตัวรับ D1 ไม่สามารถเพิ่มความดันภายในโพรงอวัยวะเพศได้เมื่อฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ (Chen et al., 1999)
มีหลักฐานเชิงทดลองหลายประการที่บ่งชี้ว่าตัวรับ D2 ในพาราเวนทริคูลาร์ ซึ่งการกระตุ้นจะทำให้เกิดการแข็งตัวของอวัยวะเพศชายนั้น ตั้งอยู่บนตัวเซลล์ของเซลล์ประสาทออกซิโทซินเนอร์จิก ประการแรก นิวเคลียสพาราเวนทริคูลาร์มีปลายประสาทโดปามีนเนอร์จิกที่อยู่ในกลุ่มเซลล์ประสาทโดปามีนเนอร์จิกที่เรียกว่า อินเซอร์โทไฮโปทาลามิก ตัวเซลล์ของเซลล์ประสาทเหล่านี้ตั้งอยู่ในกลุ่ม A13 และ A14ของ Dahlstrom และ Fuxe (1964) แตกแขนงออกไปอย่างกว้างขวางและไปเลี้ยงโครงสร้างไฮโปทาลามัสหลายแห่ง รวมถึงเซลล์ประสาทออกซิโทซินเนอร์จิกในพาราเวนทริคูลาร์ที่ส่งสัญญาณไปยังนิวโรไฮโปฟิซิสและ/หรือไปยังบริเวณสมองนอกไฮโปทาลามัส (Buijs et al., 1984; Lindvall et al., 1984)
การมีส่วนร่วมของเซลล์ประสาท dopaminergic เหล่านี้ในระดับ paraventricular ในการควบคุมการแข็งตัวของอวัยวะเพศชายและการมีเพศสัมพันธ์ได้รับการสนับสนุนโดยการศึกษา microdialysis แสดงให้เห็นว่าความเข้มข้นของ dopamine extracellular และ 3,4-dihydroxyphenylacetic acid (DOPAC) เพิ่มขึ้นใน dialysate นิวเคลียส paraventricular ของหนูเพศผู้ที่มีศักยภาพทางเพศแสดงการแข็งตัวของ noncontact เมื่อวางต่อหน้าเอสโตรเจนรังไข่ที่ไม่สามารถเข้าถึงได้ของเอสโตรเจน + หญิงที่รับฮอร์โมนโปรเจสเตอโรน (Melis et al., 2003)
ระดับความเข้มข้นของโดปามีนและ DOPAC เพิ่มสูงขึ้นไปอีกเมื่ออนุญาตให้มีการผสมพันธุ์กับตัวเมียที่พร้อมรับการผสมพันธุ์ (Melis et al., 2003) ดังที่พบในบริเวณมีเดียลพรีออปติก (Hull et al., 1995) และในนิวเคลียสแอคคัมเบนส์ (Pfaus and Everitt, 1995) ประการที่สอง การศึกษาหลายชิ้นแสดงให้เห็นว่าการแข็งตัวของอวัยวะเพศชายที่เกิดจากการกระตุ้นตัวรับ D2 ในบริเวณพาราเวนทริคูลาร์นั้น เกิดจากการหลั่งออกซิโทซินในบริเวณเหล่านี้ดังนั้น อะโพมอร์ฟีนที่ให้ในปริมาณที่ทำให้เกิดการแข็งตัวของอวัยวะเพศชาย พบว่าสามารถเพิ่มความเข้มข้นของออกซิโทซินได้ ไม่เพียงแต่ในพลาสมาของหนูและลิง (Melis et al., 1989a; Cameron et al., 1992) แต่ยังรวมถึงในบริเวณสมองนอกไฮโปทาลามัส เช่น ฮิปโปแคมปัส (Melis et al., 1990) ด้วยจากผลลัพธ์เหล่านี้ เมื่อเร็ว ๆ นี้พบว่าอะโพมอร์ฟีนที่ฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ในปริมาณที่ทำให้เกิดการแข็งตัวของอวัยวะเพศชาย สามารถเพิ่มความเข้มข้นของโดปามีนนอกเซลล์ในนิวเคลียสแอคคัมเบนส์ได้เช่นกัน ซึ่งผลดังกล่าวจะลดลงเมื่อฉีดสารต้านตัวรับออกซิโทซิน d(CH2)5Tyr(Me)2-Orn8-vasotocin เข้าไปในบริเวณเวนทรัลเทกเมนทัล (Succu et al., 2007; Melis et al., 2009a) (ดูเพิ่มเติมในส่วนที่ 4) ประการที่สาม การทำลายเนื้อเยื่อด้วยไฟฟ้าแบบสองข้างของนิวเคลียสพาราเวนทริคูลาร์ ซึ่งกำจัดออกซิโทซินออกจากบริเวณสมองนอกไฮโปทาลามัสเกือบทั้งหมด (Hawthorn et al., 1985) จะทำให้การแข็งตัวของอวัยวะเพศชายที่เกิดจากอะโพมอร์ฟีนหายไป (Argiolas et al., 1987a) และสารต้านตัวรับออกซิโทซินแบบเลือกเฉพาะที่ฉีดเข้าไปในโพรงสมองด้านข้าง แต่ไม่ฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ จะลดการแข็งตัวของอวัยวะเพศชายที่เกิดจากอะโพมอร์ฟีนอย่างขึ้นอยู่กับปริมาณยา โดยมีประสิทธิภาพเทียบเท่ากับสารประกอบเหล่านี้ในการปิดกั้นตัวรับออกซิโทซิน (Melis et al., 1989b) สารต้านตัวรับออกซิโทซินยังมีประสิทธิภาพสูงมากในการลดการกระตุ้นพฤติกรรมทางเพศของเพศชายที่เกิดจากออกซิโทซินและอะโพมอร์ฟีน (Argiolas et al., 1988, 1989)
สำหรับกลไกที่ตัวรับ D2 ถูกกระตุ้นโดยโดปามีนหรือสารกระตุ้นตัวรับโดปามีน จะเพิ่มกิจกรรมของเซลล์ประสาทออกซิโทซิน ทำให้มีการปล่อยออกซิโทซินในบริเวณสมองนอกไฮโปทาลามัสและในไขสันหลังนั้น ข้อมูลจากการทดลองจำนวนมากสนับสนุนสมมติฐานที่ว่า การกระตุ้นตัวรับ D2 จะเพิ่มความเข้มข้นของไอออน Ca2+ ภายในเซลล์ของเซลล์ประสาทออกซิโทซิน นำไปสู่การกระตุ้นเอนไซม์ไนตริกออกไซด์ซินเทสซึ่งเป็นเอนไซม์ที่ขึ้นอยู่กับ Ca2+-calmodulin ที่มีอยู่ในเซลล์เหล่านี้ (Vincent and Kimura, 1992; Torres et al., 1993; Sanchez et al., 1994; Sato-Suzuki et al., 1998) การผลิตไนตริกออกไซด์ที่เพิ่มขึ้นจะทำให้เกิดการกระตุ้นเซลล์ประสาทออกซิโทซินตามมา ดังนั้น (1) การแข็งตัวของอวัยวะเพศที่เกิดจากอะโพมอร์ฟีนถูกยับยั้งโดยสารปิดกั้นช่องแคลเซียมอินทรีย์และโดย α-conotoxin GVIA ซึ่งเป็นสารปิดกั้นช่อง Ca2+ ที่ขึ้นอยู่กับแรงดันไฟฟ้าชนิด N ที่มีประสิทธิภาพและเลือกได้ (McCleskey et al., 1987) ซึ่งให้เข้าไปในนิวเคลียสพาราเวนทริคูลาร์ (ดู Argiolas et al., 1990 และเอกสารอ้างอิงในนั้น); (2) การแข็งตัวของอวัยวะเพศที่เกิดจากอะโพมอร์ฟีนถูกยับยั้งโดยสารยับยั้งไนตริกออกไซด์ซินเทสที่ให้เข้าไปในนิวเคลียสพาราเวนทริคูลาร์ (Melis et al., 1994c) และ (3) อะโพมอร์ฟีนและสารกระตุ้นตัวรับ D2 อื่นๆ ที่ให้ในขนาดที่ทำให้เกิดการแข็งตัวของอวัยวะเพศชายจะเพิ่มการผลิตไนตริกออกไซด์ในไดอะไลเซตพาราเวนทริคูลาร์ที่ได้จากไมโครไดอะไลซิสในสมอง ซึ่งการเพิ่มขึ้นนี้ลดลงโดยสารยับยั้งไนตริกออกไซด์ซินเทสพาราเวนทริคูลาร์ที่ให้ในขนาดที่ลดการแข็งตัวของอวัยวะเพศชายที่เกิดจากสารกระตุ้นตัวรับ D2 (Melis et al., 1996) กลไกที่ไนตริกออกไซด์กระตุ้นเซลล์ประสาทออกซิโทซิเนอร์จิกพาราเวนทริคูลาร์ยังคงไม่เป็นที่ทราบแน่ชัด แม้ว่าข้อมูลที่มีอยู่จะบ่งชี้ว่าไนตริกออกไซด์ทำหน้าที่เป็นสารสื่อสารภายในเซลล์และกัวนิเลตไซเคลสไม่ได้เกี่ยวข้อง อันที่จริง พบว่าสารอะนาล็อกของไซคลิก GMP ที่ต้านทานฟอสโฟไดเอสเตอเรสอย่าง 8-โบรโม-ไซคลิก GMP ไม่สามารถกระตุ้นการแข็งตัวของอวัยวะเพศชายได้เมื่อฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ (รูปที่ 2) (ดู Melis และ Argiolas, 1995b และเอกสารอ้างอิงในนั้น)
การตีความข้างต้นมักถูกมองว่าไม่น่าเชื่อถือ ส่วนใหญ่เป็นเพราะการกระตุ้นตัวรับโดปามีน D2 มักเชื่อมโยงกับการยับยั้งมากกว่าการกระตุ้นเซลล์ประสาทที่มีตัวรับเหล่านี้ผ่านกลไกที่เชื่อมโยงกับโปรตีน G ที่แตกต่างกัน (ดู Sokoloff และ Schwartz, 1995) อย่างไรก็ตาม คำอธิบายที่เป็นไปได้สำหรับความไม่สอดคล้องกันนี้ ซึ่งสอดคล้องกับการกระตุ้นโดยตรงของเซลล์ประสาทออกซิโทซิเนอร์จิกในโพรงสมองโดยโดปามีน ได้รับการเสนอแนะเมื่อเร็ว ๆ นี้โดยการค้นพบ ตัวรับโดปา มีน D4 ที่เชื่อมโยงกับโปรตีน Gซึ่งเป็นสมาชิกของตระกูลตัวรับ D2 (D2, D3 และ D4) การกระตุ้นตัวรับนี้จะเพิ่มการไหลเข้าของ Ca2+ ในเซลล์ที่เตรียมขึ้นซึ่งมีตัวรับย่อยชนิดนี้ที่ถูกโคลน (Moreland et al., 2004) ที่สำคัญกว่านั้น พบว่าสารกระตุ้นตัวรับ D4 แบบเลือกจำเพาะ (เช่น ABT 724) (N-methyl-4-(2-cyanophenyl)piperazynil-3methylbenzamide maleate) สามารถกระตุ้นการแข็งตัวของอวัยวะเพศในหนูตัวผู้ได้เมื่อให้ทางระบบ (Brioni et al., 2004) แต่ไม่พบผลเช่นนี้กับสารกระตุ้นตัวรับ D2 แบบเลือกจำเพาะ PNU-95666E (R-5,6-dihydro-N,N-dimethyl-4Himidazo[ 4,5,1-i]quinolin-5-amine) (Hsieh et al., 2004) ซึ่งยังไม่สามารถเพิ่มการไหลเข้าของ Ca2+ ในเซลล์ที่เตรียมด้วยตัวรับ D4 ที่ถูกโคลน (Brioni et al., 2004; Moreland et al., 2004) จากสมมติฐานและผลการวิจัยข้างต้น พบว่า PD 168,077 (N-methyl-4-(2-cyanophenyl)piperazynil-3methylbenzamide maleate), PIP-3EA (2-[4-(2-methoxyphenyl) piperazin-1-ylmethyl]imidazo[1,2-a]pyridine) และสารกระตุ้นตัวรับ D4 ที่เลือกจำเพาะอื่นๆ (Heier et al., 1997; Melis et al., 2006b; Löber et al., 2009) สามารถกระตุ้นการแข็งตัวของอวัยวะเพศชายได้เมื่อฉีดเข้าสู่ระบบร่างกาย เข้าสู่โพรงสมอง และเข้าสู่บริเวณพาราเวนทริคูลาร์นิวเคลียส แม้ว่าจะได้ผลน้อยกว่าอะโพมอร์ฟีนก็ตาม ฤทธิ์กระตุ้นการแข็งตัวของอวัยวะเพศของสารกระตุ้นตัวรับ D4 เหล่านี้ถูกยับยั้งโดย L-745,870 (3-(4-[chlorophenyl] piperazin-1-yl)-methyl-1H-pyrrolo[2,3-B]pyridine trihydrochloride) ซึ่งเป็นสารต้านตัวรับ D4 ที่เลือกจำเพาะ (Patel et al., 1997; Melis et al., 2005, 2006b; Löber et al., 2009)
ในที่สุดผลของการกระตุ้นการรับของตัวรับ D4 ข้างต้นก็ลดลงโดยตัวยับยั้งไนตริกออกไซด์ - synthase, ตัวรับออกซิเจนที่เลือกเข้าสู่นิวเคลียส paraventricular และโดย d (CH2) 5Tyr (Me) 2-Orn8-vasotocin ได้รับ icv แต่ไม่อยู่ในนิวเคลียส paraventricular ผลลัพธ์เหล่านี้สอดคล้องกับสมมุติฐานที่ว่าตัวรับ D4 agonists ยังกระตุ้นเซลล์ประสาท oxytocinergic โดยเปิดใช้งานไนตริกออกไซด์ - เอทิส, และปล่อย oxytocin ในพื้นที่สมอง extrahypothalamic ซึ่งจะอำนวยความสะดวกในการแข็งตัวของอวัยวะเพศชายเช่น apomorphine และคลาสสิก D2 agonists ., 2005, 2006b; Löberและคณะ, 2009)
ผลการศึกษาข้างต้นยังสนับสนุนสมมติฐานที่ว่าโดปามีนกระตุ้นการแข็งตัวของอวัยวะเพศชายโดยการออกฤทธิ์ต่อตัวรับ D4 ที่อยู่บนตัวเซลล์ของเซลล์ประสาทออกซิโทซิเนอร์จิกในพาราเวนทริคูลาร์ ซึ่งทำให้เกิดการไหลเข้าของ Ca2+ เข้าสู่ตัวเซลล์ของเซลล์ประสาทออกซิโทซิเนอร์จิกเพิ่มขึ้น นำไปสู่การผลิตไนตริกออกไซด์ที่เพิ่มขึ้นไนตริกออกไซด์จะไปกระตุ้นเซลล์ประสาทออกซิโทซิเนอร์จิกให้ปล่อยออกซิโทซินในบริเวณสมองนอกไฮโปทาลามัสและในไขสันหลัง ดังที่ได้กล่าวไปแล้ว ในส่วนนี้เป็นที่น่าสังเกตว่ามีการระบุตัวรับโดปามีนในตัวเซลล์ของเซลล์ประสาทออกซิโทซิเนอร์จิกในนิวเคลียสพาราเวนทริ คูลา ร์เมื่อไม่นานมานี้โดยการศึกษาด้วยวิธีอิมมูโนฟลูออเรสเซนซ์คู่โดยใช้แอนติบอดีตัวรับ D2, D3 และ D4 ที่มีความจำเพาะสูง และแอนติบอดีออกซิโทซิน การศึกษาเหล่านี้แสดงให้เห็นถึงการแสดงออกของตัวรับ D2 ทั้งสามชนิดย่อย (D2, D3 และ D4) ซึ่งมีการอยู่ร่วมกันแยกกันในเซลล์ประสาทออกซิโทซินในนิวเคลียสพาราเวนทริคูลาร์ (และในนิวเคลียสซูพราออปติกและบริเวณพรีออปติกส่วนกลางด้วย) (Baskerville และ Douglas, 2008; Baskerville และคณะ, 2009)
งานวิจัยนี้ให้การสนับสนุนทางประสาทกายวิภาคศาสตร์อย่างแข็งแกร่งต่อความเป็นไปได้ที่โดปามีนและสารกระตุ้นตัวรับโดปามีนชนิด D2 จะเหนี่ยวนำให้เกิดการแข็งตัวของอวัยวะเพศชายโดยการกระตุ้นเซลล์ประสาทออกซิโทซินที่ส่งสัญญาณไปยังบริเวณสมองนอกไฮโปทาลามัสที่กล่าวถึงข้างต้นโดยตรงเช่น ไขสันหลัง บริเวณเท็กเมนตัมส่วนล่าง ฮิปโปแคมปัส และอะมิกดาลา อย่างไรก็ตาม ผลการค้นพบเหล่านี้ไม่ได้ช่วยในการระบุชนิดย่อยของตัวรับ D2 ที่การกระตุ้นทำให้เกิดการแข็งตัวของอวัยวะเพศ น่าเสียดายที่แม้แต่การศึกษาที่มุ่งเป้าไปที่การระบุเซลล์ประสาทออกซิโทซินที่ถูกกระตุ้นโดยสารกระตุ้นตัวรับโดปามีนในนิวเคลียสพาราเวนทริคูลาร์ก็ยังไม่สามารถให้ความช่วยเหลือได้ อันที่จริง แม้ว่าสารกระตุ้นตัวรับโดปามีนชนิดต่างๆ จะออกฤทธิ์แตกต่างกัน แต่ทั้งสารกระตุ้นตัวรับโดปามีนแบบผสม (เช่น อะโพมอร์ฟีน) หรือสารกระตุ้นตัวรับ D2 แบบเลือกเฉพาะ (เช่น ควินพิโรล ซึ่งออกฤทธิ์กับตัวรับ D2 ทุกชนิด) หรือสารกระตุ้นตัวรับ D4 แบบเลือกเฉพาะ ล้วนทำให้เกิดการกระตุ้นเซลล์ประสาทออกซิโทซิเนอร์จิก ดังที่วัดได้จากการเพิ่มขึ้นของโปรตีน FOS ในเซลล์ประสาทออกซิโทซิเนอร์จิกขนาดเล็กของนิวเคลียสพาราเวนทริคูลาร์ (Bitner et al., 2006) อย่างไรก็ตาม ผลการค้นพบนี้ถูกตั้งคำถามเมื่อไม่นานมานี้ เนื่องจากพบว่าการเพิ่มขึ้นของโปรตีน FOS ในเซลล์ประสาทออกซิโทซิเนอร์จิกบริเวณพาราเวนทริคูลาร์เกิดขึ้นเฉพาะเมื่อมีการกระตุ้นการแข็งตัวของอวัยวะเพศชายด้วยควิเนโรเลน ซึ่งออกฤทธิ์หลักต่อตัวรับชนิด D2 และ D3 แต่ไม่ใช่ด้วย PD 168077 ซึ่งเป็นตัวกระตุ้นตัวรับชนิด D4 แม้ว่าสารประกอบทั้งสองชนิดจะสามารถกระตุ้นการตอบสนองทางเพศได้ก็ตาม (Baskerville et al., 2009)
การทดลองเพิ่มเติมกับผู้ชำนาญการเลือกของประเภทย่อยตัวรับ D2 อื่น ๆ (ส่วนใหญ่ D2 และ D3) มีความจำเป็นต้องระบุบทบาทที่แน่นอนของแต่ละชนิดย่อยตัวรับโดปามีนในการควบคุมการทำงานของอวัยวะเพศในระดับ Paraventricular ในเรื่องนี้ตามที่ได้กล่าวมาแล้วก่อนหน้านี้ apomorphine ซึ่งทำหน้าที่อย่างมีประสิทธิภาพกับเชื้อตัวรับโดปามีนทั้งหมด (ดู Brioni et al., 2004 และการอ้างอิงในนั้น) นั้นมีประสิทธิภาพมากกว่าตัวรับ D4 ในการกระตุ้นอวัยวะเพศชาย นิวเคลียส. สิ่งนี้อาจอธิบายได้ด้วยความสัมพันธ์ที่สูงขึ้นของ apomorphine ในตัวรับ D4 เมื่อเปรียบเทียบกับตัวรับตัวรับ D4 ที่ทดสอบโดย agonists หรืออีกวิธีหนึ่ง agonists ตัวรับ D4 อาจทำหน้าที่เป็นตัวรับ D4 ที่แตกต่างกัน ผลิตกระตุ้นเซลล์ประสาท oxytocinergic ไกล่เกลี่ยที่สูงขึ้นการสร้างอวัยวะเพศชายกว่าการเปิดใช้งานโดยตัวรับ D2 agonists ของ D4 ชนิดย่อยตัวรับเท่านั้น
มีการอธิบายปฏิสัมพันธ์ระหว่างตัวรับโดปามีน D1 และ D2 ในการควบคุมพฤติกรรมทางเพศในระดับบริเวณมีเดียลพรีออปติกไว้แล้ว (ดู Hull et al., 1989) ในกรณีที่ยืนยันว่าสารกระตุ้นตัวรับ D2 ที่เลือกเฉพาะเจาะจงไม่สามารถทำให้เกิดการแข็งตัวของอวัยวะเพศได้ (Hsieh et al., 2004) (แต่ดู Depoortère et al., 2009) ตัวอย่างเช่น แม้หลังจากฉีดสารประกอบเหล่านี้เข้าไปในนิวเคลียสพาราเวนทริคูลาร์แล้ว บทบาทสำคัญของตัวรับ D3 เพียงอย่างเดียวหรือร่วมกับตัวรับ D4 ในการกระตุ้นเซลล์ประสาทออกซิโทซินที่ทำหน้าที่ในการแข็งตัวของอวัยวะเพศควรได้รับการวิเคราะห์อย่างละเอียด (ดู Baskerville et al., 2009) น่าเสียดายที่ในปัจจุบันยังไม่มีสารกระตุ้นตัวรับ D2 และ D3 ที่เลือกจำเพาะ (เช่น สารที่มีความแตกต่างกันในความสัมพันธ์กับตัวรับทั้งสองชนิดนี้อย่างน้อยสี่ถึงห้าลำดับความ magnitud ในการทดลองในหลอดทดลอง) ด้วยเหตุนี้ ข้อเสนอแนะล่าสุดที่ว่าตัวรับ D3 เป็นตัวกลางในการแข็งตัวของอวัยวะเพศที่เกิดจากสารกระตุ้นตัวรับ D2 แบบดั้งเดิม ซึ่งส่วนใหญ่มาจากความสามารถของสารต้านตัวรับ D3 ที่คาดการณ์ไว้ซึ่งมีลักษณะเฉพาะในการทดลองในหลอดทดลอง ในการลดการแข็งตัวของอวัยวะเพศที่เกิดจากสารกระตุ้น D2 แบบดั้งเดิม เช่น อะโพมอร์ฟีน ควินพิโรล และพรามิเพ็กโซล ซึ่งกระตุ้นตัวรับโดปามีน D2 ทุกชนิดอย่างมีประสิทธิภาพ (Collins et al., 2009) จึงจำเป็นต้องได้รับการตรวจสอบยืนยันด้วยการทดลองอื่น ๆ ต่อไป การตรวจสอบความถูกต้องนี้มีความจำเป็นเช่นกัน เนื่องจากในการศึกษาครั้งนี้ไม่พบผลกระทบของสารกระตุ้นตัวรับ D4 ต่อการแข็งตัวของอวัยวะเพศชาย ซึ่งแตกต่างอย่างมากกับผลการศึกษาที่อ้างถึงข้างต้น ซึ่งแสดงให้เห็นถึงผลกระตุ้นการแข็งตัวของอวัยวะเพศชายของสารกระตุ้นตัวรับ D4 ที่จริงแล้ว แม้แต่ความสามารถของอะโพมอร์ฟีนในการกระตุ้นการแข็งตัวของอวัยวะเพศชาย (และการหาว) ในหนูที่ขาดตัวรับ D4 ด้วยความแรงที่เหมือนกับที่พบในหนูปกติที่ขาดตัวรับ D4 และความสามารถของสารต้านตัวรับ D3 ในการยับยั้งการตอบสนองของอะโพมอร์ฟีนในสัตว์เหล่านี้ (Collins et al., 2009) ก็ไม่สามารถถือเป็นหลักฐานที่แน่ชัดสำหรับบทบาทเฉพาะของตัวรับ D3 ในการกระตุ้นการแข็งตัวของอวัยวะเพศชายโดยสารกระตุ้นตัวรับ D2 ได้ นอกเหนือจากความแตกต่างระหว่างสายพันธุ์แล้ว การศึกษาเกี่ยวกับการตัดยีนของสารสื่อประสาท/นิวโรเปปไทด์ และ/หรือตัวรับสารสื่อประสาท/นิวโรเปปไทด์ (สัตว์ทดลองที่ยีนสารสื่อประสาท/นิวโรเปปไทด์ และ/หรือตัวรับสารสื่อประสาท/นิวโรเปปไทด์ถูกตัดออก) มักจะเพิ่มความสับสนและความซับซ้อนในการยืนยันบทบาททางเพศที่คาดการณ์ไว้ของสารสื่อประสาท และ/หรือนิวโรเปปไทด์ และตัวรับของพวกมัน กล่าวคือ การตัดยีนออกซิโทซินทำให้ได้หนูทดลองที่ยีนออกซิโทซินถูกตัดออกซึ่งสามารถผสมพันธุ์และร่วมเพศได้ตามปกติ ราวกับว่าออกซิโทซินไม่จำเป็นสำหรับการผสมพันธุ์และร่วมเพศ นอกจากนี้ หนูทดลองเพศเมียที่ยีนออกซิโทซินถูกตัดออกแบบโฮโมไซกัสก็แสดงการผสมพันธุ์และการคลอดลูกตามปกติ แม้ว่าจะมีการหลั่งน้ำนมที่บกพร่องอย่างเห็นได้ชัด (Nishimori et al., 1996; Young et al., 1996) การกำจัดยีนที่เข้ารหัสเอนไซม์ไนตริกออกไซด์ซินเทสในเซลล์ประสาท ส่งผลให้หนูที่ขาดเอนไซม์ไนตริกออกไซด์ซินเทสยังคงผสมพันธุ์และร่วมเพศได้ตามปกติ (Huang et al., 1993) ทั้งๆ ที่เอนไซม์ไนตริกออกไซด์ซินเทสผลิตไนตริกออกไซด์ ซึ่งเป็นตัวกลางทางสรีรวิทยาหลักอย่างหนึ่งของการแข็งตัวของอวัยวะเพศชาย ทั้งในระดับอวัยวะเพศ (Burnett et al., 1992; Rajfer et al., 1992) และในระดับส่วนกลาง ในนิวเคลียสพาราเวนทริคูลาร์ของไฮโปทาลามัส (Argiolas, 1994; Benelli et al., 1995; Melis et al., 1998) อย่างไรก็ตาม ผลการค้นพบเหล่านี้อาจบ่งชี้ถึงคุณลักษณะที่สำคัญอย่างหนึ่งของสรีรวิทยาการสืบพันธุ์ นั่นคือ ความซ้ำซ้อนของระบบที่เกี่ยวข้องกับการควบคุมในระดับส่วนกลางและส่วนปลาย
ความซ้ำซ้อนดังกล่าวมีต้นกำเนิดมาจากการวิวัฒนาการอย่างแน่นอน เนื่องจากเป็นการรับประกันการส่งต่อยีนไปยังรุ่นต่อไปเพื่อความอยู่รอดของสายพันธุ์ดังนั้น ข้อเท็จจริงที่ว่าการกำจัดยีนตัวรับ D4 ไม่เปลี่ยนแปลงผลการกระตุ้นการแข็งตัวของอวัยวะเพศของอะโพมอร์ฟีน แสดงให้เห็นว่าตัวรับ D4 เช่นเดียวกับออกซิโทซินและไนตริกออกไซด์ เป็นเพียงตัวกลางบางส่วนที่ทำงานในระบบควบคุมการแข็งตัวของอวัยวะเพศ มากกว่าที่จะบ่งชี้ว่าตัวรับเหล่านี้ไม่มีบทบาทในการควบคุมการแข็งตัวของอวัยวะเพศและพฤติกรรมทางเพศ ความล้มเหลวของสารกระตุ้น D4 ในการกระตุ้นการแข็งตัวของอวัยวะเพศเมื่อให้ทางระบบแก่หนูตัวผู้สายพันธุ์ต่างๆ ได้รับการรายงานเมื่อเร็วๆ นี้โดยการศึกษาอื่น (Depoortère et al., 2009) อย่างไรก็ตาม ตรงกันข้ามกับงานของ Collins et al. (2009) และเพื่อให้ภาพรวมเกี่ยวกับบทบาทของชนิดย่อยต่างๆ ของตัวรับ D2 ในการควบคุมการแข็งตัวของอวัยวะเพศชายมีความซับซ้อนยิ่งขึ้น งานวิจัยนี้ยังแสดงให้เห็นว่า สารต้านตัวรับ D3 ที่คาดว่ามีฤทธิ์เฉพาะเจาะจงซึ่งให้ทางระบบไม่สามารถลดการแข็งตัวของอวัยวะเพศชายที่เกิดจากอะโพมอร์ฟีนในหนูตัวผู้สายพันธุ์ที่ไวต่อผลกระตุ้นการแข็งตัวของอะโพมอร์ฟีน ในขณะที่การตอบสนองทางเพศ (และการหาว) ถูกยับยั้งโดยสารต้าน D2 ที่มีฤทธิ์เฉพาะเจาะจง L-741,626 (3-[[4-(4-chlorophenyl)-4-hydroxypiperidin-1-yl]methyl-1H-indole) ทำให้ผู้เขียนเสนอแนะว่าตัวรับ D2 มากกว่าตัวรับ D3 และ D4 เป็นตัวรับที่มีบทบาทสำคัญในการกระตุ้นการแข็งตัวของอวัยวะเพศชายที่เกิดจากสารกระตุ้น D2 (Depoortère et al., 2009) สุดท้ายนี้ ความเป็นไปได้ที่ผลกระตุ้นของสารกระตุ้นตัวรับโดปามีนต่อเซลล์ประสาทออกซิโทซิเนอร์จิกที่ควบคุมการแข็งตัวของอวัยวะเพศชายนั้น อาจเป็นไปในทางอ้อมมากกว่าทางตรง เช่น อาจถูกควบคุมหรือได้รับอิทธิพลจากการเปลี่ยนแปลงในกิจกรรมของสารสื่อประสาทเปปไทด์อื่นๆ ที่สามารถปรับเปลี่ยนกิจกรรมของเซลล์ประสาทออกซิโทซิเนอร์จิกในนิวเคลียสพาราเวนทริคูลาร์นั้น ก็ยังไม่สามารถตัดทิ้งไปได้ทั้งหมด
3.2 การทำงานร่วมกันของกรดกลูตามิกอกซินในนิวเคลียส paraventricular
นิวเคลียสพาราเวนทริคูลาร์ของไฮโปทาลามัสอุดมไปด้วยไซแนปส์ที่มีกรดอะมิโนกระตุ้นเป็นสารสื่อประสาท (เช่น กรดกลูตามิกและกรดแอสปาร์ติก ) (Van Den Pol, 1991) กรดอะมิโนกระตุ้นในนิวเคลียสนี้มีส่วนเกี่ยวข้องกับหน้าที่ต่างๆ มากมาย รวมถึงการแข็งตัวของอวัยวะเพศชายและพฤติกรรมทางเพศ (Roeling et al., 1991; Melis et al., 1994b, 2000, 2004b) ดังนั้น N-methyl-d-aspartic acid (NMDA) ซึ่งเป็นตัวกระตุ้นแบบเลือกเฉพาะของตัวรับ NMDA แต่ไม่ใช่ (±)-_-amino-3-hydroxy-5-methyl-isoxazole-4-propionic acid (AMPA) ซึ่งเป็นตัวกระตุ้นแบบเลือกเฉพาะของตัวรับ AMPA หรือ (±)-trans(1)-amino-1,3-cyclopentane dicarboxilic acid (ACPD) ซึ่งเป็นตัวกระตุ้นแบบเลือกเฉพาะของตัวรับเมตาโบโทรปิก สามารถทำให้เกิดการแข็งตัวของอวัยวะเพศได้เมื่อฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ของหนูที่เคลื่อนไหวได้อย่างอิสระ (Melis et al., 1994b) ผลกระทบต่อการกระตุ้นการแข็งตัวของอวัยวะเพศของ NMDA ถูกยับยั้งโดย (+)MK-801 ซึ่งเป็นสารต้านตัวรับ NMDA แบบไม่แข่งขัน (Woodruff et al., 1987) ที่ฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ (Melis et al., 1994b) สอดคล้องกับผลลัพธ์เหล่านี้ ในการศึกษาทางไกลที่มุ่งเป้าไปที่การตรวจสอบความดันภายในโพรงอวัยวะเพศ พบว่า NMDA มีฤทธิ์มากกว่าสารกระตุ้นของตัวรับกรดอะมิโนกระตุ้นชนิดอื่นๆ เมื่อฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์เพื่อเพิ่มความดันภายในโพรงอวัยวะเพศในหนูตัวผู้ที่ตื่นตัวหรือถูกวางยาสลบ (Zahran et al., 2000; Chen and Chang, 2003)
ดังที่ได้กล่าวไว้ข้างต้นสำหรับออกซิโทซินและโดปามีน มีความเป็นไปได้ว่าตัวรับ NMDA ที่เป็นตัวกลางในการแข็งตัวของอวัยวะเพศชายนั้นตั้งอยู่ในเซลล์ประสาทออกซิโทซิน เนื่องจากปลายประสาทของกรดอะมิโนกระตุ้นจะไปกระทบกับเซลล์ประสาทออกซิโทซินในนิวเคลียสพาราเวนทริคูลาร์ (Van Den Pol, 1991) ในทำนองเดียวกันกับที่พบในสารกระตุ้นตัวรับโดปามีน ผลกระทบในการกระตุ้นการแข็งตัวของอวัยวะเพศของ NMDA นั้นเห็นได้ชัดว่าเกิดจากการกระตุ้นการส่งสัญญาณประสาทออกซิโทซิน ซึ่งจะถูกยับยั้งโดยสารต้านออกซิโทซิน d(CH2)5Tyr(Me)2-Orn8-vasotocin ที่ให้ทางโพรงสมอง แต่ไม่ถูกยับยั้งเมื่อให้เข้าไปในนิวเคลียสพาราเวนทริคูลาร์ (ดู Argiolas และ Melis, 1995, 2004, 2005 และเอกสารอ้างอิงในนั้น) ในทำนองเดียวกัน การกระตุ้นการส่งสัญญาณประสาทออกซิโทซินโดย NMDA ก็เป็นผลรองมาจากการกระตุ้นไนตริกออกไซด์ซินเทสเช่นกัน เนื่องจากภาวะองคชาตแข็งตัวที่เกิดจาก NMDA จะถูกยับยั้งโดยสารยับยั้งไนตริกออกไซด์ซินเทส (N-Nitro-N-methyll-arginine methyl ester และ N-methyl-thio-l-citrulline) ที่ฉีดเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ และการฉีด NMDA เข้าไปในนิวเคลียสพาราเวนทริคูลาร์ในปริมาณที่ทำให้เกิดการแข็งตัวขององคชาต จะเพิ่มการผลิตไนตริกออกไซด์ในนิวเคลียสไฮโปทาลามัส (ดู Argiolas และ Melis, 1995, 2004, 2005 และเอกสารอ้างอิงในนั้น) สำหรับสารกระตุ้นตัวรับโดปามีน การกระตุ้นไนตริกออกไซด์ซินเทสโดย NMDA อาจเป็นผลรองมาจากการเพิ่มขึ้นของการไหลเข้าของ Ca2+ ในเซลล์ประสาทออกซิโทซิเนอร์จิกผ่านตัวรับ NMDA ที่เชื่อมต่อกับช่อง Ca2+ ดังที่แสดงในตัวอย่างประสาทหลายตัวอย่าง (สำหรับบทสรุป โปรดดู Snyder, 1992; Southam และ Garthwaite, 1993; Schuman และ Madison, 1994 และเอกสารอ้างอิงในนั้น) ไนตริกออกไซด์จะกระตุ้นการส่งสัญญาณประสาทออกซิโทซิเนอร์จิก (ดูข้างต้น) ต้นกำเนิดของการฉายภาพกลูตาเมอร์จิกที่กระตุ้นเซลล์ประสาทออกซิโทซิเนอร์จิกพาราเวนทริคูลาร์ที่ทำหน้าที่ในการแข็งตัวของอวัยวะเพศชายยังไม่เป็นที่ทราบแน่ชัด แม้ว่าหลักฐานทางกายวิภาคศาสตร์ของระบบประสาทและทางสรีรวิทยาไฟฟ้าบางอย่างจะชี้ให้เห็นว่าอาจมีต้นกำเนิดอย่างน้อยบางส่วนในฮิปโปแคมปัส (Saphier และ Feldman, 1987; Chen et al., 1992) แม้ว่าจำเป็นต้องมีการศึกษาเพิ่มเติมเพื่อระบุที่มาของการส่งสัญญาณกลูตาเมอร์จิกไปยังนิวเคลียสพาราเวนทริคูลาร์ให้ดียิ่งขึ้น แต่การมีส่วนร่วมของกรดกลูตามิกในนิวเคลียสพาราเวนทริคูลาร์ในการควบคุมการแข็งตัวของอวัยวะเพศชายและพฤติกรรมทางเพศนั้นได้รับการสนับสนุนอย่างชัดเจนจากการศึกษาด้วยไมโครไดอะไลซิส ดังนั้น ความเข้มข้นของกรดกลูตามิกและกรดแอสปาร์ติกนอกเซลล์จึงเพิ่มขึ้นในสารละลายไดอะไลเซตที่ได้จากนิวเคลียสพาราเวนทริคูลาร์ของหนูตัวผู้ที่แสดงการแข็งตัวของอวัยวะเพศโดยไม่ต้องสัมผัส เมื่ออยู่ในบริเวณที่มีหนูตัวเมียที่พร้อมรับการผสมพันธุ์ซึ่งได้รับการกระตุ้นด้วยเอสโตรเจนและโปรเจสเตอโรน (Melis et al., 2004b) การแข็งตัวของอวัยวะเพศนี้ยังถูกควบคุมโดยการกระตุ้นการส่งสัญญาณออกซิโทซินในส่วนกลางด้วย (Melis et al., 1999a,b) พบว่าการเพิ่มขึ้นดังกล่าวสูงขึ้นไปอีกเมื่ออนุญาตให้มีการผสมพันธุ์กับหนูตัวเมียที่พร้อมรับการผสมพันธุ์ (Melis et al., 2004a) สอดคล้องกับสมมติฐานที่ว่ากิจกรรมของกรดอะมิโนกระตุ้นเพิ่มขึ้นในนิวเคลียสพาราเวนทริคูลาร์ระหว่างการแข็งตัวของอวัยวะเพศชายและการร่วมเพศ การแข็งตัวของอวัยวะเพศโดยไม่สัมผัสและการร่วมเพศ (ซึ่งในระหว่างการร่วมเพศจะมีการแข็งตัวของอวัยวะเพศชายเกิดขึ้น) จะลดลงเมื่อมีการปิดกั้นตัวรับ NMDA ในนิวเคลียสพาราเวนทริคูลาร์ และการลดลงนี้จะตามมาด้วยการลดลงของการเพิ่มขึ้นของการผลิตไนตริกออกไซด์ที่เกิดขึ้นในนิวเคลียสไฮโปทาลามัสนี้ในบริบททางสรีรวิทยาเหล่านี้ (Melis et al., 2000) จากการศึกษาพบว่า การเพิ่มขึ้นของความเข้มข้นของกรดกลูตามิกนอกเซลล์ ซึ่งเป็นผลมาจากการลดลงของการปล่อย GABA จากปลายประสาท GABAergic ที่ไปกระทบกับไซแนปส์กรดอะมิโนกระตุ้นที่อยู่ติดกับเซลล์ประสาทออกซิโทซิเนอร์จิกนั้น เกิดขึ้นในนิวเคลียสพาราเวนทริคูลาร์หลังจากปิดกั้นตัวรับแคนนาบินอยด์ CB1 ด้วยสารต้าน CB1 SR 141761A โดยให้ยาเข้าไปในโพรงสมองด้านข้างหรือให้โดยตรงในนิวเคลียสพาราเวนทริคูลาร์ในปริมาณที่ทำให้เกิดการแข็งตัวของอวัยวะเพศชาย (ดู Succu et al., 2006; Castelli et al., 2007) การเพิ่มขึ้นดังกล่าวทำให้เกิดการกระตุ้นเอนไซม์ไนตริกออกไซด์ซินเทสในเซลล์ประสาทออกซิโทซิเนอร์จิก ส่งผลให้มีการผลิตไนตริกออกไซด์เพิ่มขึ้น ไนตริกออกไซด์จะไปกระตุ้นเซลล์ประสาทออกซิโทซิเนอร์จิก ทำให้เกิดการแข็งตัวของอวัยวะเพศชายดังที่กล่าวมาข้างต้น ตามกลไกดังกล่าว การแข็งตัวของอวัยวะเพศที่เกิดจาก SR 141761A ลดลงเมื่อมีการปิดกั้นตัวรับ NMDA และสารยับยั้งไนตริกออกไซด์ซินเทส แต่ไม่ลดลงเมื่อมีการปิดกั้นตัวรับโดปามีนหรือออกซิโทซินในนิวเคลียสพาราเวนทริคูลาร์ ในขณะที่การปิดกั้นตัวรับออกซิโทซินส่วนกลางด้วยสารต้านตัวรับออกซิโทซินที่ให้ทางช่องโพรงสมองสามารถป้องกันการแข็งตัวของอวัยวะเพศได้ (Melis et al., 2004a, 2006a)
3.3 ปฏิกิริยาออกซิโตซิน - โดปามีนในพื้นที่หน้าท้อง
ออกซิโตซินเจือจางอวัยวะเพศชายเมื่อถูกฉีดเข้าไปในส่วนของหางบริเวณหน้าท้องในระดับภูมิภาคขึ้นอยู่กับปริมาณยา -(Melis et al., 2007) ปริมาณที่ใช้งานต่ำสุดที่ฉีดเพียงฝ่ายเดียวคือ 20 ng ในขณะที่ปริมาณสูงสุดที่ทดสอบคือ 100 ng ผลออกซิโตซินนั้นถูกสื่อกลางโดยการกระตุ้นการรับ oxytocinergic เนื่องจากการตอบสนองทางเพศถูกยกเลิกโดยการฉีดยาก่อนหน้าของคู่อริ oxytocin antagonist d (CH2) 5Tyr (Me) 2-Orn8-vasotocin ตัวรับเหล่านี้ถูกแปลเป็นภาษาท้องถิ่นในเซลล์ของเซลล์ประสาทโดปามีนซึ่งส่วนใหญ่เป็นโครงของเปลือกของนิวเคลียส accumbens (1) จากการศึกษาของ immuno-fluorescence คู่แสดงให้เห็นว่าในบริเวณท้องท้องบริเวณท้องท้องท้องของเส้นใย oxytocinergic oxytocinergic ก่อนหน้านี้มีการสัมผัสใกล้ชิดกับเซลล์ร่างกายของเซลล์ประสาท dopaminergic ซึ่งส่วนใหญ่มีการติดป้ายเชิงบวกสำหรับ tyrosine-hydroxylase ฉีดเข้าไปในเปลือกของนิวเคลียส accumbens (Melis et al., 2007) และ (2) บริเวณหน้าท้องส่วนล่างของการสร้างอวัยวะเพศชายที่เกิดจากอุ้งเชิงกรานที่เกิดขึ้นพร้อมกับการเพิ่มขึ้นของความเข้มข้นของโดปามีนในเซลล์ นิวเคลียส accumbens (Melis et al., 2007) การแข็งตัวของอวัยวะเพศชายก็เกิดขึ้นพร้อมกันกับการเพิ่มขึ้นของการผลิตไนตริกออกไซด์ในบริเวณท้องร่วง tegmental - การตอบสนองของทั้งคู่ไม่ได้เกิดจากการที่ d (CH2) 5Tyr (Me) 2-Orn8-vasotocin methyl-thio-l-citrulline แต่โดย _-conotoxin, Ca2 แรงดันไฟฟ้าที่ขึ้นกับแชนเนล + แชนเนลและโดย ODQ (1H- [1,2,4] oxadiazole [4,3-a] quinoxalin-1-one) ไซโคสทั้งหมดที่ได้รับในบริเวณหน้าท้องของหางเสือก่อนออกซิโตซิน (Succu et al., 2008) พบว่าเป็นบวกสำหรับไทโรซีนไฮดรอกซิเลสในบริเวณหน้าท้องส่วนล่างของหางปลานอกจากนี้ยังพบว่ามีผลในเชิงบวกสำหรับไนตริกออกไซด์และไซยาไนด์ (ซัคคูเอตอัล, 2008) - การแข็งตัวของอวัยวะเพศชายอาจจะเป็นสื่อกลางโดยกลไกต่อไปนี้ การเปิดใช้งานของผู้รับ oxytocinergic ในเซลล์ dopaminergic โดยเปปไทด์เพิ่ม Ca2 + ไหลบ่าเข้ามาภายในร่างกายเซลล์ของเซลล์ประสาท dopaminergic สิ่งนี้จะกระตุ้นการทำงานของ nitric oxide-synthase ซึ่งเป็นเอนไซม์ที่ขึ้นกับ Ca2 + -calmodulin ซึ่งจะเป็นการเพิ่มการผลิตไนตริกออกไซด์ ไนตริกออกไซด์จะเปิดใช้งาน guanylate cyclase ซึ่งนำไปสู่การเพิ่มความเข้มข้นของ cyclic GMP Cyclic GMP เปิดใช้งานเซลล์ประสาทโดปามีนซึ่งฉายไปที่นิวเคลียส accumbens บทบาทของ cyclic GMP ในการแข็งตัวของอวัยวะเพศชายที่เกิดจาก oxytocin ที่ถูกฉีดเข้าไปในบริเวณหน้าท้องด้านหางของหางเสือก็ยังได้รับการสนับสนุนโดยความสามารถของ 8-bromo-cyclic GMP ซึ่งเป็นอะนาล็อกที่ทนต่อฟอสฟอรัส บริเวณหน้าท้องบริเวณหางและเพื่อเพิ่มโดปามีนเซลล์พิเศษใน dialysate จากนิวเคลียส accumbens (Succu et al., 2008; Melis et al., 2009a) นี่เป็นความแปรปรวนของกลไกที่ไนตริกออกไซด์กระตุ้นให้เซลล์ประสาท oxytocinergic ในนิวเคลียส paraventricular เป็น 8-bromo-cyclic GMP ไม่สามารถกระตุ้นอวัยวะเพศชายเมื่อฉีดเข้าไปในนิวเคลียสนี้ (Melis and Argiolas, 1995b) (รูปที่ 2) บทบาทของโดพามีนที่ปล่อยออกมาในนิวเคลียสแอคคัมเบนส์ในการแข็งตัวขององคชาตที่เกิดจากออกซิโทซินที่ฉีดเข้าไปในบริเวณเทกเมนทัลด้านท้องส่วนท้ายได้รับการสนับสนุนจากความสามารถของฮาโลเพอริดอล ซึ่งเป็นสารต้านตัวรับโดพามีนที่มีประสิทธิภาพซึ่งฉีดเข้าไปในนิวเคลียสแอคคัมเบนส์ในการลดการตอบสนองต่อออกซิโทซิน (Melis et al., 2007)ในฐานะที่เป็นเส้นทางประสาทที่เปิดใช้งานโดยโดปามีนในนิวเคลียส accumbens ที่นำไปสู่การแข็งตัวของอวัยวะเพศชายเหล่านี้ยังไม่ทราบ อย่างไรก็ตามข้อมูลที่มีอยู่ชี้ให้เห็นว่าเส้นทางเหล่านี้เปิดใช้งานสารสื่อประสาทโดปามีนในนิวเคลียส paraventricular ของมลรัฐ ดังนั้นการสร้างอวัยวะเพศชายออกซิโตซินที่เกิดขึ้นควบคู่ไปกับการเพิ่มขึ้นของโดปามีนเซลล์เสริมไม่เพียง แต่ใน นิวเคลียส accumbens แต่ยังอยู่ในนิวเคลียส paraventricular และเป็นปฏิปักษ์โดยตัวรับโดปามีน haloperidol ศัตรูฉีดเข้าไปในนิวเคลียส paraventricular (Melis et al., 2007) จะร่วมกันผลลัพธ์เหล่านี้สนับสนุนความคิดที่ว่าเซลล์ประสาท oxytocinergic ที่เกิดขึ้นในนิวเคลียส paraventricular และคาดการณ์ไปยังบริเวณหน้าท้อง caudal ventral tegmental เมื่อเปิดใช้งานปล่อย oxytocin ในพื้นที่นี้จึงเปิดใช้งานระบบการส่งสัญญาณสัญญาณ no-cyclic GMP, ซึ่งจะเปิดใช้งานเซลล์ประสาท dopaminergic mesolimbic (Melis et al., 2007, 2009a; Succu et al., 2008) โดปามีนที่ปล่อยออกมาในนิวเคลียส accumbens จะเปิดใช้งานเซลล์ประสาทที่นำไปสู่การเปิดใช้งานของเซลล์ประสาท dopaminergic dopaminergic - ซึ่งทำให้เกิดการกระตุ้นเซลล์ประสาทออกฤทธิ์ paraventricular oxytocinergic ในเวลาเดียวกันโดปามีนที่ปล่อยออกมาในนิวเคลียส paraventricular อาจกระตุ้นเซลล์ประสาท oxytocinergic ที่ยื่นไปยังบริเวณสมองส่วนนอกที่มีลักษณะผิดปกติเช่นพื้นที่ tegmental ventral, hippocampus, amygdala และพื้นที่สมองอื่น ๆ
ดังที่กล่าวไว้ข้างต้น สอดคล้องกับสมมติฐานนี้ การฉีดอะโพมอร์ฟีนเข้าไปในนิวเคลียสพาราเวนทริคูลาร์ในปริมาณที่ทำให้เกิดการแข็งตัวของอวัยวะเพศชาย ยังเพิ่มความเข้มข้นของโดปามีนนอกเซลล์ในนิวเคลียสแอคคัมเบนส์ด้วย ซึ่งผลดังกล่าวจะลดลงเมื่อฉีดสารต้านตัวรับออกซิโทซิน d(CH2)5Tyr(Me)2-Orn8-vasotocin เข้าไปในบริเวณเวนทรัลเทกเมนทัล (Succu et al., 2007; Melis et al., 2009a) โดยรวมแล้ว เส้นทางประสาทข้างต้นอาจประกอบกันเป็นวงจรประสาทสมมุติฐานที่เกี่ยวข้องกับโดปามีน ออกซิโทซิน และสารสื่อประสาทอื่นๆ (เช่น กรดกลูตามิก ดูด้านล่าง) ซึ่งมีอิทธิพลไม่เพียงแต่ต่อสมรรถภาพทางเพศเท่านั้น แต่ยังรวมถึงแรงจูงใจทางเพศและการให้รางวัลทางเพศด้วย (ดูหัวข้อที่ 4)
3.4 ปฏิกิริยาระหว่างกรดอ๊อกซิโตซิน - กลูตามิกในอวัยวะย่อยหน้าท้องของฮิบโป
ออกซิโตซินก่อให้เกิดการแข็งตัวของอวัยวะเพศชายเมื่อฉีดเข้าไปในช่องท้อง แต่ไม่ได้อยู่ใน subiculum ที่หลังในลักษณะที่ขึ้นกับขนาดยา (Melis et al., 2009b) การตอบสนองทางเพศนั้นเกิดจากการกระตุ้นการรับ oxytocin ซึ่งถูกยกเลิกโดยการฉีดก่อนหน้าของ d (CH2) 5Tyr (Me) 2-Orn8-vasotocin ที่พบในบริเวณเดียวกันของ oxytocin ที่พบในพื้นที่สมองอื่น (ดูด้านบน) . สำหรับการแปลของตัวรับเหล่านี้ข้อมูลที่มีอยู่ชี้ให้เห็นว่ามีการแปลเป็นภาษาท้องถิ่นในเซลล์ของเซลล์ประสาทที่อุดมด้วยไนตริกออกไซด์
ดังนั้น การศึกษาด้วยวิธีไมโครไดอะไลซิสแสดงให้เห็นว่า การแข็งตัวของอวัยวะเพศชายที่เกิดจากออกซิโทซินเกิดขึ้นพร้อมกับการเพิ่มขึ้นของการผลิตไนตริกออกไซด์ในซับบิคูลัมส่วนล่าง และการเพิ่มขึ้นนี้จะถูกยับยั้งไม่เพียงแต่โดยการฉีดสารยับยั้งไนตริกออกไซด์ซินเทส S-methyl-thio-l-citrulline และสารกำจัดไนตริกออกไซด์อย่างฮีโมโกลบินเท่านั้น แต่ยังรวมถึง d(CH2)5Tyr(Me)2-Orn8-vasotocin ด้วย โดยทั้งหมดนี้จะถูกฉีดเข้าไปในบริเวณเดียวกับที่ฉีดออกซิโทซินในปริมาณที่ยับยั้งการแข็งตัวของอวัยวะเพศชาย (Melis et al., 2010) ที่สำคัญกว่านั้น การแข็งตัวของอวัยวะเพศชายที่เกิดจากออกซิโทซินเกิดขึ้นพร้อมกับการเพิ่มขึ้นของความเข้มข้นของกรดกลูตามิกนอกเซลล์ในซับบิคูลัมส่วนล่าง ซึ่งถูกยับยั้งเพียงบางส่วนโดยสารต้านตัวรับ NMDA แบบไม่แข่งขัน (+)MK-801 ที่ฉีดเข้าไปในซับบิคูลัมส่วนล่าง (Melis et al., 2010) ผลลัพธ์เหล่านี้ชี้ให้เห็นว่าไนตริกออกไซด์ที่เกิดขึ้นใหม่ ทำหน้าที่เป็นสารสื่อสารระหว่างเซลล์ กระตุ้นการส่งสัญญาณประสาทของกรดกลูตามิก นำไปสู่การแข็งตัวของอวัยวะเพศชาย อาจผ่านการส่งสัญญาณประสาทจากซับบิคูลัมส่วนล่างไปยังบริเวณสมองนอกฮิปโปแคมปัส สอดคล้องกับสมมติฐานนี้การฉีด NMDA เข้าไปในซับบิคูลัมส่วนล่างจะกระตุ้นการแข็งตัวของอวัยวะเพศชายในลักษณะที่ขึ้นอยู่กับปริมาณ และผลกระทบนี้จะถูกยับยั้งอย่างสมบูรณ์โดยการฉีด (+)MK-801 เข้าไปในบริเวณเดียวกันก่อนหน้านี้ แต่ไม่ถูกยับยั้งโดย S-methyl-thio-l-citrulline, ฮีโมโกลบิน หรือ d(CH2)5Tyr(Me)2-Orn8-vasotocin (Melis et al., 2010) สำหรับเส้นทางประสาทที่ส่งไปยังบริเวณสมองนอกฮิปโปแคมปัสที่ถูกกระตุ้นโดยกรดอะมิโนกระตุ้น (เช่น กรดกลูตามิก) ในซับบิคูลัมส่วนล่างนั้น มีความเป็นไปได้ว่าเส้นทางเหล่านี้เป็นกลูตาเมอร์จิก เช่นเดียวกับเส้นทางประสาทที่ส่งไปยังฮิปโปแคมปัสส่วนใหญ่ในขณะนี้ อาจกล่าวได้เพียงว่า การฉายภาพเหล่านี้ไปปรับการทำงานของเซลล์ประสาทโดปามีนในระบบเมโซลิมบิก ซึ่งจะไปปรับการทำงานของเซลล์ประสาทโดปามีนในระบบไฮโปทาลามัสในนิวเคลียสพาราเวนทริคูลาร์ ส่งผลให้เกิดการกระตุ้นเซลล์ประสาทออกซิโทซินที่ทำหน้าที่ในการแข็งตัวของอวัยวะเพศชาย ดังที่ได้กล่าวไปแล้ว (ดูด้านบน)
ดังนั้น การแข็งตัวขององคชาตที่เกิดจากออกซิโทซินในซับบิคูลัมส่วนล่างจึงเกิดขึ้นพร้อมกับการเพิ่มขึ้นของความเข้มข้นของโดปามีนนอกเซลล์ในเปลือกของนิวเคลียสแอคคัมเบนส์ และการเพิ่มขึ้นนี้ เช่นเดียวกับการแข็งตัวขององคชาต จะถูกยับยั้งโดย d(CH2)5Tyr(Me)2-Orn8-vasotocin ที่ฉีดเข้าไปในซับบิคูลัมส่วนล่างก่อนออกซิโทซิน (Melis et al., 2009b) นอกจากนี้ เนื่องจากอาการแข็งตัวของอวัยวะเพศที่เกิดจากออกซิโทซินในบริเวณเวนทรัลซับคิวลัมลดลงเมื่อฉีด (+)MK-801 เข้าไปในบริเวณเวนทรัลเทกเมนทัล แต่ไม่ลดลงเมื่อฉีดเข้าไปในนิวเคลียสแอคคัมเบนส์ (Melis et al., 2009b) และเกิดขึ้นพร้อมกับการเพิ่มขึ้นของกรดกลูตามิกนอกเซลล์ในบริเวณเวนทรัลเทกเมนทัล แต่ไม่เพิ่มขึ้นในนิวเคลียสแอคคัมเบนส์ โดยทั้งสองปฏิกิริยาถูกยับยั้งโดย d(CH2)5Tyr(Me)-Orn8-vasotocin ที่ฉีดเข้าไปในเวนทรัลซับคิวลัมก่อนออกซิโทซิน (ดูรูปที่ 3) จึงเป็นไปได้ว่าการกระตุ้นเซลล์ประสาทโดปามีนในบริเวณเมโซลิมบิกเป็นผลรองมาจากการส่งสัญญาณประสาทกลูตาเมตที่เพิ่มขึ้นในบริเวณเวนทรัลเทกเมนทัล สิ่งนี้ชี้ให้เห็นว่ามีการทำงานร่วมกันระหว่างกรดกลูตามิกและโดปามีนที่ควบคุมการแข็งตัวของอวัยวะเพศชายในบริเวณเวนทรัลเทกเมนทัลจำเป็นต้องมีการศึกษาเพิ่มเติมเพื่อตรวจสอบว่าเส้นทางกลูตาเมตที่กระตุ้นการแข็งตัวของอวัยวะเพศจากซับบิคูลัมไปยังบริเวณเวนทรัลเทกเมนทัลนั้นเป็นเส้นทางตรงหรือเส้นทางอ้อม กล่าวคือ ผ่านทางคอร์เทกซ์ส่วนหน้าหรือบริเวณสมองอื่นๆ (ดู Melis et al., 2009b และเอกสารอ้างอิงในนั้น) เนื่องจากนิวเคลียสพาราเวนทริคูลาร์ยังได้รับเส้นใยประสาทกลูตาเมอร์จิกจากฮิปโปแคมปัส (ดูข้างต้นและ Saphier และ Feldman, 1987) และกรดกลูตามิกกระตุ้นเซลล์ประสาทออกซิโทซิเนอร์จิกในพาราเวนทริคูลาร์ รวมถึงเซลล์ประสาทที่ส่งเส้นใยประสาทไปยังบริเวณเวนทรัลเทกเมนทัล (ดู Argiolas และ Melis, 2005 และเอกสารอ้างอิงในนั้น) และออกซิโทซินในบริเวณเวนทรัลเทกเมนทัลทำให้เกิดการแข็งตัวของอวัยวะเพศชายและเพิ่มกิจกรรมของเซลล์ประสาทโดปามีนเนอร์จิกในระบบเมโซลิมบิก (ดูข้างต้น) จึงเป็นไปได้ที่จะคาดเดาว่าเซลล์ประสาทออกซิโทซิเนอร์จิกในพาราเวนทริคูลาร์อาจมีส่วนเกี่ยวข้องอย่างน้อยบางส่วนในการกระตุ้นเซลล์ประสาทโดปามีนเนอร์จิกในระบบเมโซลิมบิกโดยออกซิโทซินที่ฉีดเข้าไปในเวนทรัลซับบิคูลัม (ดูหัวข้อที่ 4)
4 สรุปข้อสังเกต
งานวิจัยที่กล่าวถึงข้างต้นยืนยันและขยายผลการค้นพบก่อนหน้านี้ที่แสดงให้เห็นว่าในหนูตัวผู้ ฮอร์โมนออกซิโทซินมีบทบาทสำคัญในการควบคุมการแข็งตัวของอวัยวะเพศชายในระดับศูนย์กลางที่นิวเคลียสพาราเวนทริคูลาร์ของไฮโปทาลามัสและไขสันหลัง โดยเฉพาะอย่างยิ่งงานวิจัยล่าสุดแสดงให้เห็นว่าออกซิโทซินมีอิทธิพลต่อการแข็งตัวของอวัยวะเพศชายโดยการออกฤทธิ์ในบริเวณสมองอื่นๆ ด้วย เช่น บริเวณเวนทรัลเทกเมนทัล บริเวณเวนทรัลซับบิคูลัม และนิวเคลียสคอร์ติคัลโพสเทอโรมีเดียลของอะมิกดาลา
ในระดับพาราเวนทริคูลาร์ การค้นพบใหม่ที่สำคัญที่สุดอาจเป็นการค้นพบการแสดงออกของตัวรับโดปามีนทั้งหมดในกลุ่ม D2 (D2, D3 และ D4) ในเซลล์ประสาทออกซิโทซิเนอร์จิกในนิวเคลียสพาราเวนทริคูลาร์ (และในนิวเคลียสซูพราออปติกและบริเวณพรีออปติกส่วนกลาง) (Baskerville และ Douglas, 2008; Baskerville และคณะ, 2009) สิ่งนี้ให้การสนับสนุนทางประสาทกายวิภาคศาสตร์อย่างแข็งแกร่งต่อสมมติฐานที่ว่าโดปามีนและสารกระตุ้นตัวรับโดปามีนอาจกระตุ้นเซลล์ประสาทออกซิโทซิเนอร์จิกที่เกี่ยวข้องกับหน้าที่การแข็งตัวของอวัยวะเพศโดยตรง และส่งสัญญาณไม่เพียงแต่ไปยังไขสันหลังเท่านั้น แต่ยังไปยังบริเวณสมองนอกไฮโปทาลามัสด้วย ในเรื่องนี้ การค้นพบว่าการเพิ่มขึ้นของความดันภายในโพรงองคชาตที่เกิดจากสารกระตุ้นตัวรับโดปามีนลดลงได้ด้วยการปิดกั้นตัวรับออกซิโทซินในไขสันหลังส่วนเอวและกระดูกสันหลังส่วนล่าง (Baskerville et al., 2009) ก็มีความสำคัญเช่นกัน แท้จริงแล้ว แม้ว่าหลักฐานดังกล่าวจะได้รับจากหนูตัวผู้ที่ถูกวางยาสลบ แต่การค้นพบนี้ก็ยืนยันถึงการกระตุ้นของเส้นทางประสาทออกซิโทซินจากพาราเวนทริคูโลไปยังไขสันหลังที่เกี่ยวข้องกับการแข็งตัวขององคชาตที่เกิดจากสารกระตุ้นตัวรับโดปามีน อย่างไรก็ตามยังต้องตรวจสอบเพิ่มเติมว่าการแข็งตัวของอวัยวะเพศชายที่เกิดจากการกระตุ้นตัวรับโดปามีนที่มีอยู่ในเซลล์ประสาทออกซิโทซินนั้น เป็นผลมาจากการกระตุ้นตัวรับโดปามีนชนิดย่อยเฉพาะของตระกูล D2 (D2, D3 หรือ D4)หรือว่าตัวรับชนิดย่อยเหล่านี้ทำงานร่วมกันในการปรับการตอบสนองต่อการแข็งตัวของอวัยวะเพศ ซึ่งอาจแตกต่างกันไปตามบริบทที่เกิดการแข็งตัวของอวัยวะเพศ (ดู Moreland et al., 2004; Enguehard-Gueiffier et al., 2006; Melis et al., 2006a,b; Löber et al., 2009; Collins et al., 2009; Depoortère et al., 2009; Baskerville et al., 2009)
การค้นพบใหม่ที่สำคัญอีกอย่างหนึ่งก็คือว่าอุซโตซินจะกระตุ้นการแข็งตัวของอวัยวะเพศชายเมื่อถูกฉีดเข้าไปในนิวเคลียส paraventricular หรือสนาม CA1 ของฮิปโปแคมปัส แต่ยังเข้าไปในบริเวณหน้าท้องส่วนปลาย พื้นที่สมองเหล่านี้ไม่ได้ทดสอบในการศึกษาก่อนหน้านี้แสดงให้เห็นว่าอุ้งเพิ่มขึ้นอวัยวะเพศชายที่เกิดขึ้นเองตอนในหนูหนูแม้ว่าพวกเขาจะได้รับเช่นประมาณการสาย oxytocinergic สันหลัง lumbo - sacral จากนิวเคลียส paraventricular ออกซิโตซินสามารถพบได้ในความสามารถในการเพิ่มการแข็งตัวของอวัยวะเพศซึ่งเกิดขึ้นในหนูเพศผู้ในกรณีที่ไม่มีสิ่งเร้าทางเพศเช่นที่มาจากการปรากฏตัวของฮอร์โมนที่สามารถเข้าถึงได้หรือไม่สามารถเข้าถึงได้ (estrogen-progesterone primed) การจัดการของอวัยวะเพศเมื่อฉีดเข้าไปในนิวเคลียส paraventricular และสนาม CA1 ของฮิพโพแคมปัส แต่ไม่ได้อยู่ใน subiculum หลัง, กะบังด้านข้าง, นิวเคลียส caudate, พื้นที่ preoptic ที่อยู่ตรงกลาง, ventromedial นิวเคลียส , 1986) ในการศึกษาทั้งหมดการแข็งตัวของอวัยวะเพศชายมักถูกนับเมื่ออวัยวะเพศชายโผล่ออกมาจากฝักอวัยวะเพศชายโดยผู้สังเกตการณ์ที่ไม่ทราบวิธีการรักษาที่กำหนดโดยตรงในระหว่างการทดลองหรือหลังจากนั้นโดยการสังเกตการทดลองที่บันทึกไว้ในวิดีโอเทป แต่ละตอนของการแข็งตัวของอวัยวะเพศชายมีระยะเวลา 0.5-1 ขั้นต่ำและมักจะมาพร้อมกับการแต่งอวัยวะเพศชายและ / หรืองอสะโพก ปกติจะไม่มีการทดลองในหนูเหล่านี้เพื่อยืนยันผลกระทบจากประสบการณ์ทางเพศอายุหรือถ้าหนูเหล่านี้สามารถแบ่งออกเป็นผู้ตอบสนองระดับต่ำหรือสูงถึงผลการกระตุ้นการแข็งตัวของออกซิโตซินที่ฉีดเข้าไปในบริเวณสมองที่แตกต่างกัน สิ่งนี้ยังนำไปใช้กับการศึกษาส่วนใหญ่เกี่ยวกับผลกระทบของสารกระตุ้นประสาทของ neuropeptides และยาอื่น ๆ ที่เพิ่มการสร้างอวัยวะเพศชายที่เกิดขึ้นเองรวมทั้ง agonists โดปามีน, กรดอะมิโน excitatory, ACTH-MSH, hexarelin และ VGF เปปไทด์ อย่างไรก็ตาม pro-erectile effect ของสารเหล่านี้ได้รับการยืนยันซ้ำแล้วซ้ำอีกโดยวิธี telemetry ซึ่งกำหนดการเกิดขึ้นของอวัยวะเพศชายจากการเพิ่มขึ้นของความดัน intracavernous ที่เกิดขึ้นเองหรือหลังจากการบริหารของสารเหล่านี้โดยเส้นทางที่แตกต่างกันเช่นระบบ intracerebroventricular โดยตรงไปยังนิวเคลียสของสมองที่เฉพาะเจาะจง, หลังจากการปลูกถ่ายของไมโครทรานสดิวเซอร์ความดันเข้าสู่ corpora โพรงโดยตรง (ดูBernabè et al., 1999) ในบริเวณหน้าท้องส่วนล่าง, subiculum หน้าท้องและนิวเคลียสด้านหลังของ amygdala นั้นยังออกซิโตซินทำให้เกิดการแข็งตัวของอวัยวะเพศชายด้วยการทำหน้าที่รับ oxytocinergic สิ่งนี้นำไปสู่การกระตุ้นการทำงานของเซลล์ประสาทที่มีต้นกำเนิดจาก mesolimbic dopaminergic ในพื้นที่หน้าท้องและการยื่นมือไปที่เปลือกของนิวเคลียส accumbens ที่วัดได้จากการเพิ่มขึ้นของความเข้มข้นของโดปามีนในเซลล์พิเศษใน dialysate ที่ได้รับจากเปลือกของนิวเคลียส accumbens และโดยการลดลงของการตอบสนองของอวัยวะเพศที่เกิดจากเปปไทด์ที่ฉีดเข้าไปในพื้นที่พิเศษ hypothalamic เหล่านี้ นิวเคลียส accumbens (ดูด้านล่าง) สำหรับกลไกที่กระตุ้นโดยตัวรับ oxytocinergic ในบริเวณสมองเหล่านี้ซึ่งนำไปสู่การกระตุ้นการทำงานของเซลล์ประสาทโดปามินอิกเมโซนิมบิก mesolimbic และอวัยวะเพศชายการแข็งตัวของอวัยวะที่ดีที่สุดคือสิ่งที่เกิดขึ้นในบริเวณหน้าท้อง อันที่จริงผลทางเภสัชวิทยาและอิมมูโนฟลูออเรสเซนซ์แสดงให้เห็นว่าปลายประสาท oxytocin กระทบกับเซลล์ของเซลล์ประสาทโดปามีเซอร์ซึ่งฉายไปที่เปลือกของนิวเคลียส accumbens (Melis et al., 2007, 2009a; Succu et al., 2008a) เซลล์ประสาทเหล่านี้จำนวนมากอุดมไปด้วยไนตริกออกไซด์ synthase และ guanylate cyclase การกระตุ้นการรับออกซิโตซินอจิคในเซลล์ของเซลล์ประสาทโดปามิเนจิกเหล่านี้ทำให้เกิดการกระตุ้นการทำงานของไนตริกออกไซด์สังเคราะห์ที่นำไปสู่การเพิ่มการผลิตไนตริกออกไซด์ ไนตริกออกไซด์จะเปิดใช้งาน guanylate cyclase ซึ่งจะเป็นการเพิ่มความเข้มข้นของ cyclic GMP ซึ่งนำไปสู่การกระตุ้นการทำงานของเซลล์ประสาทโดปามีนจาก mesolimbic และการปลดปล่อยโดปามีนในนิวเคลียส accumbens ซึ่งวัดโดยการเพิ่มขึ้นของโดปามีนในเซลล์พิเศษใน dialysate จากนิวเคลียส accumbens ที่ได้จาก intra-cerebral microdialysis (Succu et al., 2008 ) โดปามีนที่ถูกปล่อยออกมาในนิวเคลียสจะเปิดใช้งานเซลล์ประสาทที่นำไปสู่การแข็งตัวของอวัยวะเพศชาย สิ่งนี้ได้รับการสนับสนุนโดยความสามารถของตัวรับโดปามีน haloperidol และ / หรือ cis-flupentixol ที่ถูกฉีดเข้าไปในนิวเคลียส accumbens เพื่อลดการแข็งตัวของอวัยวะเพศชายบริเวณหน้าท้อง (ซัคคิวและอัล, 2008) หนึ่งในเส้นทางการเคลื่อนไหวของอวัยวะเพศชายดูเหมือนว่าจะกระตุ้นเซลล์ประสาทโดปามินอิกแบบอินโดโปรแตร์ตัล - hypothalamic โดยเฉพาะอย่างยิ่งสิ่งเหล่านั้นที่นำไปสู่เซลล์ร่างกายของเซลล์ประสาท oxytocinergic paraventricular แน่นอนว่าอุซโตซินที่ฉีดเข้าไปในบริเวณหน้าท้องของหางเสือเพิ่มระดับโดปามีนนอกเซลล์ไม่เพียง แต่ในส่วนของอัลคูซิแอซิดที่เกิดจากการหลั่ง แต่ยังอยู่ในนิวเคลียส paraventricular และการปิดล้อมตัวรับโดปามีนในนิวเคลียส , 2007, 2008; Melis และคณะ, 2007, 2009a) การดำรงอยู่ของนิวเคลียสเหล่านี้ accumbens โดพามีน - paraventricular โดพามีน - paraventricular oxytocin - ventral พื้นที่ tegmental เชื่อมโยง oxytocin - โดปามีน ยังได้รับการแนะนำโดยความสามารถของปริมาณโปร - เอพมอร์ฟินและตัวรับ D4 agonist PD 168077 ที่ฉีดเข้าไปในนิวเคลียส paraventricular เพื่อเพิ่มโดปามีนเซลล์พิเศษในเปลือกของนิวเคลียส accumbens (Succu et al., 2007) ที่ถูกยกเลิกโดย d (CH2) 5Tyr (Me) - Orn8-vasotocin ที่มอบให้ในบริเวณหน้าท้องส่วนล่าง (Melis et al., 2009a ดูด้านล่าง) อย่างไรก็ตามจำเป็นต้องมีการทำงานเพิ่มเติมเพื่อระบุเส้นทางของระบบประสาทที่เชื่อมต่อนิวเคลียส accumbens กับระบบ dopaminergic incerto-hypothalamic
กลไกที่ออกซิโตซินก่อให้เกิดการแข็งตัวของอวัยวะเพศชายและเปิดใช้งานเซลล์ประสาท dopaminergic mesolimbic เมื่อฉีดเข้าไปใน subiculum หน้าท้องหรือเข้าไปในนิวเคลียส posteromedial ของ amygdala เข้าใจเพียงบางส่วนในขณะนี้ ในพื้นที่เหล่านี้ oxytocin เปิดใช้งานตัวรับของมันเองซึ่งนำไปสู่การกระตุ้นการทำงานของไนตริกออกไซด์ - synthase ซึ่งจะเป็นการเพิ่มการผลิตไนตริกออกไซด์ ไนตริกออกไซด์จะเปิดใช้งานการคาดการณ์ที่ไม่รู้จักซึ่งเห็นได้ชัดว่าการเพิ่มขึ้นของสารสื่อประสาท glutamatergic ในพื้นที่ tegmental หน้าท้อง กรดกลูตามิกจากนั้นก็กระตุ้นเซลล์ประสาทโดปามิเนจิก mesolimbic ที่นำไปสู่การแข็งตัวของอวัยวะเพศชายสมมติฐานนี้ได้รับการสนับสนุนส่วนใหญ่จากความสามารถของอุซโตซินที่ถูกฉีดเข้าไปในอวัยวะย่อยหน้าท้องเพื่อเพิ่มกรดกลูตามิกเซลล์พิเศษในพื้นที่หน้าท้อง (รูปที่ 14) 3), และ NMDA receptor antagonist ที่ไม่แข่งขัน (+) MK-801 ถูกฉีดเข้าไปในบริเวณหน้าท้องส่วนล่าง, แต่ไม่อยู่ในนิวเคลียส accumbens, เพื่อลดการแข็งตัวของอวัยวะเพศชายที่เกิดจากอุ้งอุ้ง ของ amygdala (Melis et al., 2009b) ในขณะนี้มีรายละเอียดเพิ่มเติมสำหรับการสร้างอวัยวะเพศชายอวัยวะเพศชายอุ้งเชิงกราน นี่คือการแข็งตัวของอวัยวะเพศชายที่เกิดจากอุ้งดูท่าทางรองการเปิดใช้งานของผู้รับ oxytocinergic ตั้งอยู่ในเซลล์ร่างกายของเซลล์ประสาทที่ประกอบด้วยไนตริกออกไซด์ - synthase ที่มี สิ่งนี้ทำให้เกิดการเพิ่มขึ้นของการผลิตไนตริกออกไซด์ซึ่งเปิดใช้งานสารสื่อประสาท glutamatergic โดยทำหน้าที่เป็นผู้ส่งสารระหว่างเซลล์ที่มีกลไกคล้ายกับที่อธิบายไว้สำหรับ potentiation ระยะยาว (ดูสไนเดอร์ 1992; Southam และ Garthwaite, 1993; Schuman และ Madison, 2004) . สอดคล้องกับสมมติฐานนี้การแข็งตัวของอวัยวะเพศชายเกิดขึ้นพร้อมกันกับการเพิ่มขึ้นของกรดกลูตามิก extracellular ใน dialysate dialysate จาก subiculum หน้าท้องและการกระตุ้นของตัวรับกรดอะมิโน excitatory ในช่องท้อง subiculum โดย NMDA ทำให้เกิดการแข็งตัวของอวัยวะเพศชาย ในทางกลับกันกรดกลูตามิกจะกระตุ้นการคาดคะเนของระบบประสาทซึ่งนำไปสู่การกระตุ้นการทำงานของเซลล์ประสาทโดปามีนในเซลล์ในพื้นที่หน้าท้องตามรายงานข้างต้น หากกลไกเหล่านี้ทำงานได้เช่นกันในนิวเคลียสของลูกทุ่งที่ไม่รู้จักในปัจจุบัน ยิ่งไปกว่านั้นจำเป็นต้องมีการศึกษาเพิ่มเติมเพื่อพิสูจน์ว่า (1) ปลายประสาท oxytocinergic และตัวรับใน ventic subiculum และในนิวเคลียสของเซลล์เม็ดเลือดขาวของ amygdala มีการแปลในเซลล์ร่างกายของเซลล์ประสาทที่ประกอบด้วยไนตริกออกไซด์ (2) ภายใต้การควบคุมของกรดอะมิโน excitatory (glutamatergic) synapses และ (3) เพื่อระบุระบบการส่งสัญญาณที่เปิดใช้งานโดยไนตริกออกไซด์ ในเรื่องนี้เป็นที่น่าสังเกตว่าความสามารถของ oxytocin ในการเพิ่มกิจกรรมไนตริกออกไซด์ - synthase ในเซลล์ของเซลล์ dopaminergic ในบริเวณหน้าท้องและหางของเซลล์ประสาทที่ยังไม่ทราบในหน้าท้อง subiculum และนิวเคลียสหลัง ความสามารถของออกซิโตซินในการกระตุ้นไนตริกออกไซด์ - synthase ในเซลล์เซลล์ของเซลล์ประสาท oxytocinergic ในนิวเคลียส paraventricular (Melis et al., 1997) อย่างไรก็ตามในขณะที่อยู่ในพื้นที่หน้าท้องการเพิ่มขึ้นของไนตริกออกไซด์ในเซลล์ร่างกายของ dopaminergic neurons นำไปสู่การเปิดใช้งานของเซลล์ประสาทเหล่านี้โดยการเปิดใช้งาน guanylate cyclase และเพิ่มวงจร GMP นี้ไม่ได้เกิดขึ้นในนิวเคลียส paraventricular ดังนั้น 8-bromo-cyclic GMP ที่ฉีดเข้าไปในนิวเคลียส paraventricular ไม่ได้ทำให้อวัยวะเพศชายแข็งตัวขณะที่ทำเช่นนั้นเมื่อฉีดเข้าไปในบริเวณหน้าท้องส่วนล่าง เส้นทางการส่งสัญญาณอื่นที่แตกต่างจากระบบ GMP nitec oxidecyclic นั้นมีส่วนเกี่ยวข้องในระดับ paraventricular ในการกระตุ้นการทำงานของเซลล์ประสาท oxytocinergic ไกล่เกลี่ยอวัยวะเพศชายแข็งตัวโดย endogenous และ / หรือภายนอกไนตริกออกไซด์ (Melis และ Argiolas, 1995b; Melis et al., 1997) . 1) ในทางกลับกัน cyclic GMP ในบริเวณหน้าท้องดูเหมือนจะมีบทบาทสำคัญในการกระตุ้นการทำงานของเซลล์ประสาทโดปามีนจาก mesolimbic dopaminergic และการเพิ่มขึ้นของโดปามีนในเซลล์เสริมที่เกิดขึ้นใน dialysate ที่ได้จากเปลือกของนิวเคลียส accumbens ของหนูเพศชาย ได้รับการคัดเลือกสำหรับการแสดงหรือไม่แสดงการแข็งตัวของอวัยวะเพศชายที่ไม่ติดต่อเมื่อใส่ตัวรับที่ไม่สามารถเข้าถึงได้ของรังไข่ (เอสโตรเจน + โปรเจสเตอโรน) ที่ไม่สามารถเข้าถึงได้ ในเงื่อนไขการทดลองเหล่านี้ในหนูตัวผู้ที่มีการแข็งตัวของอวัยวะเพศชายพบว่าการเพิ่มขึ้นของความเข้มข้นโดปามีนในเซลล์พบได้ตามที่คาดไว้และการเพิ่มขึ้นนี้จะเพิ่มขึ้นอีกแม้เพียงเล็กน้อยโดย phosphodiesterase inhibitors อัล, 2009) ในทางตรงกันข้าม ในหนูตัวผู้ที่ไม่แสดงการแข็งตัวแบบไม่สัมผัส ซึ่งไม่พบการเพิ่มขึ้นที่เห็นได้ชัดของโดพามีนนอกเซลล์ในนิวเคลียสแอคคัมเบนส์ พบว่าความเข้มข้นของโดพามีนนอกเซลล์เพิ่มขึ้นอย่างเห็นได้ชัดจากการใช้สารยับยั้งฟอสโฟไดเอสเทอเรสที่บริเวณเทกเมนทัลด้านท้องด้านท้าย และพบการแข็งตัวแบบไม่สัมผัส (Sanna et al., 2009)
ความสามารถของออกซิโทซินที่ฉีดเข้าไปในบริเวณหน้าท้องในส่วนของหน้าท้องและในส่วนของเยื่อหุ้มสมองชั้นนอกของเยื่อหุ้มสมองและเยื่อหุ้มสมองชั้นนอกของอะโดเมกาลีเซอร์พร้อมกับของโดปามีน agonists ที่ฉีดเข้าไปในนิวเคลียส paraventricular . ประการแรกกลไกที่คล้ายกับกลไกที่จำได้ข้างต้นอาจใช้งานได้เมื่อการแข็งตัวของอวัยวะเพศชายเกิดขึ้นในบริบททางสรีรวิทยาเช่นระหว่างมีเพศสัมพันธ์ (เมื่ออยู่ในภาวะอวัยวะเพศชายแข็งตัว) หรือในระหว่างการแข็งตัวของอวัยวะเพศชายแบบไม่ติดต่อ การแข็งตัวของอวัยวะเพศหญิงนี้เกิดจากการแข็งตัวของอวัยวะเพศชายโดยการใช้ยาหรือออกซิโตซินซึ่งเกิดขึ้นเมื่อหนูเพศผู้มีสมรรถภาพทางเพศถูกนำเข้าสู่ที่ซึ่งไม่สามารถเข้าถึงได้ (ovariectomized estrogen + progesterone primed) ความเร้าอารมณ์ (Sachs, 1997, 2007) ถึงแม้ว่าผลลัพธ์เหล่านี้จะไม่แสดงให้เห็นว่ายาออกซิโตซินในพื้นที่เหล่านี้มีบทบาทในการแข็งตัวของอวัยวะเพศชายที่เกิดขึ้นในบริบททางสรีรวิทยาหรือหลังจากการใช้ยาพวกเขาเพิ่มความแข็งแกร่งมากขึ้นต่อการค้นพบในระยะแรก ไม่เพียง แต่การแข็งตัวของอวัยวะเพศชายที่เกิดขึ้นเองตามที่เห็นหลังจากการใช้ยาเสริมสมรรถภาพทางเพศ แต่ยังเพื่อปรับปรุงพฤติกรรมทางเพศของผู้ชาย (และเพศหญิง) (ดู Argiolas และ Melis, 2004 และการอ้างอิงในนั้น) ดังนั้นความเข้มข้นของออกซิโตซินจะเพิ่มขึ้นในฮิบโปคัสตัสของหนูเพศชายที่ได้รับ apomorphine ซึ่งเป็น pro-erectile ซึ่งเป็น oxopocin แบบดั้งเดิมที่มีโดพามีน (Melis et al., 1990) และ d (CH2) 5Tyr (Me) -Orn8-vasotocin ตัวรับมีประสิทธิภาพอย่างมากไม่เพียง แต่ในการลดพฤติกรรมการตกตะกอน (Argiolas et al., 1987a) เท่านั้น แต่ยังส่งผลต่อการสร้าง apomorphine ต่อพฤติกรรมการมีเพศสัมพันธ์ของผู้ชาย (Argiolas et al., 1987b) ในเพศผู้ที่มีสมรรถภาพทางเพศ เกิดขึ้น d (CH2) 5Tyr (Me) - ORN8-vasotocin ยังมีศักยภาพสูงในการลดการแข็งตัวของ noncontact ในหนูตัวผู้ที่มีเพศสัมพันธ์เมื่อให้จำนวนนาโนเมตรในโพรงด้านข้าง แต่ไม่เข้า PVN (Melis et al., 1999a)
ประการที่สอง เซลล์ประสาทโดปามีนในระบบเมโซลิมบิกมีบทบาทสำคัญในคุณสมบัติด้านแรงจูงใจและการให้รางวัลของสิ่งเร้าเสริมแรงตามธรรมชาติ เช่น อาหาร น้ำ และกิจกรรมทางเพศ (Fibiger and Phillips, 1988; Wise and Rompre, 1989; Everitt, 1990) โดยเฉพาะอย่างยิ่ง โดปามีนที่หลั่งออกมาจากเซลล์ประสาทเหล่านี้ เชื่อกันว่าทำหน้าที่เป็นตัวกลางในการเปลี่ยนแง่มุมด้านแรงจูงใจของสิ่งเร้าตามธรรมชาติไปสู่พฤติกรรมที่มุ่งเป้าหมาย ตัวอย่างเช่น ในกรณีของกิจกรรมทางเพศ การแสวงหาคู่ครองทางเพศ และการมีเพศสัมพันธ์เพื่อให้ได้รับรางวัลและความพึงพอใจ (Goto and Grace, 2005) ดังนั้น ความเข้มข้นของโดปามีนนอกเซลล์จึงเพิ่มขึ้นในของเหลวที่ได้จากการล้างโพรงสมองส่วนนิวเคลียสแอคคัมเบนส์ของหนูตัวผู้ที่พร้อมผสมพันธุ์ เมื่อสัมผัสกับหนูตัวเมียที่ถูกตัดรังไข่และได้รับการกระตุ้นด้วยเอสโตรเจนและโปรเจสเตอโรน ซึ่งไม่สามารถเข้าถึงได้ และการเพิ่มขึ้นดังกล่าวจะยิ่งสูงขึ้นไปอีกเมื่อหนูตัวผู้ได้รับอนุญาตให้ผสมพันธุ์กับหนูตัวเมียที่พร้อมผสมพันธุ์ (Pfaus และ Everitt, 1995)
ประการที่สามผลลัพธ์ในปัจจุบันสนับสนุนสมมติฐานที่ว่าวงจรประสาทเชื่อมต่อนิวเคลียส paraventricular กับพื้นที่หน้าท้อง tegmental โดยตรงหรือโดยอ้อม (ผ่านทาง subiculum หน้าท้องและ / หรือนิวเคลียสเยื่อหุ้มสมอง posteromedial ของ amygdala) และนิวเคลียส accumbens ทางเดินกลับไปยังนิวเคลียส paraventricular เพื่อควบคุมกิจกรรมของเซลล์ประสาท oxytocinergic ฉายไปที่เส้นประสาทไขสันหลัง mediating อวัยวะเพศชายแข็งตัวของอวัยวะเพศและเซลล์ประสาท oxytocinergic ฉายไปที่หน้าท้องด้านล่าง tegmental กิจกรรมของเซลล์ประสาทโดปามีน (mesolimbic dopaminergic) (รูปที่ 4) วงจรประสาทที่ซับซ้อนนี้อาจมีบทบาทในการบูรณาการกิจกรรมของระบบประสาทที่เกี่ยวข้องกับการควบคุมความสมบูรณ์ของอวัยวะเพศและพฤติกรรมทางเพศในบริบททางสรีรวิทยา แท้จริงแล้วโดปามีนเสริมเซลล์เพิ่มขึ้นในนิวเคลียส accumbens (Pfaus และ Everitt, 1995) และในนิวเคลียส paraventricular ของหนูเพศผู้ที่มีศักยภาพทางเพศในระหว่างการสัมผัสกับหนูเพศเมียที่ไม่สามารถเข้าถึงได้และเมื่อมีการแข็งตัวของอวัยวะเพศชาย เช่นเมื่ออยู่ในภาวะอวัยวะเพศชายแข็งตัว (Melis et al., 2003) ดังนั้นถึงแม้ว่าการศึกษาเพิ่มเติมมีความจำเป็นที่จะต้องอธิบายบทบาทของออกซิโตซินภายนอกในพื้นที่หน้าท้อง, อวัยวะย่อย ventral และ amygdala ในระหว่างการแข็งตัวของ noncontact และพฤติกรรมทางเพศก็อาจมีเหตุผลที่จะสันนิษฐานว่าวงจรประสาทสมมุตินี้ ด้านพฤติกรรมการบริโภคทางเพศในเวลาเดียวกันอาจเปิดใช้งานระบบ dopaminergic mesolimbic ให้สารตั้งต้นระบบประสาทสำหรับการอธิบายคุณสมบัติที่คุ้มค่าของกิจกรรมทางเพศ (Everitt, 1990; Pfaus และ Everitt, 1995) ในเรื่องนี้เป็นที่น่าสังเกตว่าระบบ dopaminergic ของ mesolimbic ที่ถูกกระตุ้นโดย oxytocin ถูกฉีดเข้าไปในบริเวณหน้าท้องจะมีการเปิดใช้งานเช่นเดียวกันกับยาเสพติดเช่น opiates, cannabinoids, amphetamine, cocaine และ alcohol (Tanda et al., 1997) พบว่าอ๊อกซิโตซินสามารถลดความทนทานและการพึ่งพาโคเคนมอร์ฟีนแอลกอฮอล์และ cannabinoids (Kovacs et al., 1998; Cui et al., 2001) โดยสรุปดูเหมือนว่าอุ้งออกไม่เพียง แต่ในบริเวณหน้าท้อง แต่ยังอยู่ใน subiculum หน้าท้องและในนิวเคลียสเยื่อหุ้มสมองหลัง posteromedial ของ amygdala สามารถเปิดใช้งานเซลล์ประสาทโดปามีน mesolimbic ซึ่งอาจมีส่วนเกี่ยวข้องในการกระตุ้นและผลตอบแทนของกิจกรรมทางเพศ . การเปิดใช้งานของเซลล์ประสาท dopaminergic mesolimbic อาจโดยตรงผ่านผู้รับ oxytocinergic ในเซลล์ของเซลล์ประสาท mesolimbic dopaminergic หรือทางอ้อมผ่านการเปิดใช้งานของเซลล์ประสาทกรดกลูตามิกในพื้นที่หน้าท้อง
โดปามีนที่ปล่อยออกมาในนิวเคลียส accumbens เปลือก modulates ในกิจกรรมของเซลล์ประสาท - dopaminergic dopaminergic ในนิวเคลียส paraventricular ทำให้เกิดการแข็งตัวของอวัยวะเพศชายทั้งสอง (ผ่านการเปิดใช้งานของเซลล์ประสาท oxytocinergic ฉายไปที่ไขสันหลัง) หรือแรงกระตุ้นทางเพศและการให้รางวัล เซลล์ประสาทที่ยื่นออกไปบริเวณหน้าท้องส่วนล่าง, หน้าท้อง subiculum หรือนิวเคลียสเยื่อหุ้มสมอง posteromedial ของ amygdala) เนื่องจากโดปามีนถูกปล่อยออกมาในเปลือกนิวเคลียสและในนิวเคลียส paraventricular เมื่อการแข็งตัวของอวัยวะเพศชายเกิดขึ้นในบริบททางสรีรวิทยา (เช่นการแข็งตัวของ noncontact และการสังวาส) (Succu et al., 2007, 2003, 2007) เป็นไปได้ว่าเซลล์ oxytocinergic ส่วนกลางมีส่วนร่วมในวงจรประสาทเป็นสื่อกลางระหว่างการทำงานร่วมกันระหว่าง mesolimbic และระบบ dopaminergic incerto-hypothalamic วงจรประสาทเหล่านี้อาจมีบทบาทไม่เพียง แต่ในช่วงของการมีเพศสัมพันธ์ (เช่นการแข็งตัวของอวัยวะเพศชายและการมีเพศสัมพันธ์) แต่ยังอยู่ในแรงจูงใจทางเพศเร้าอารมณ์ทางเพศและรางวัลทางเพศ
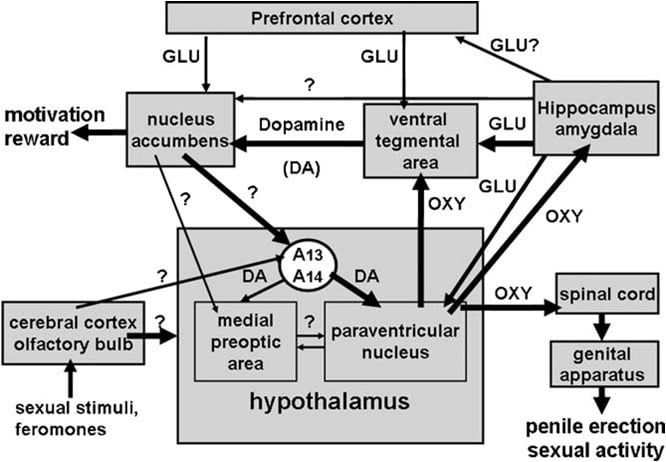
ภาพแสดงแผนผังวงจรประสาทสมมุติฐานที่เกี่ยวข้องกับออกซิโทซินซึ่งมีอิทธิพลต่อแรงจูงใจทางเพศ การให้รางวัล และสมรรถภาพทางเพศ ตามที่เสนอแนะจากผลการวิจัยในบทนี้และรายงานก่อนหน้านี้เซลล์ประสาทออกซิโทซินที่กำเนิดจากนิวเคลียสพาราเวนทริคูลาร์และส่งสัญญาณไปยังไขสันหลัง เมื่อถูกกระตุ้นโดยโดปามีนและกรดกลูตามิก (แต่ยังรวมถึงสารสื่อประสาทและ/หรือนิวโรเปปไทด์อื่นๆ ด้วย) จะช่วยให้องศาแข็งตัวและสมรรถภาพทางเพศดีขึ้นโดยการกระตุ้นเซลล์ประสาทออกซิโทซินที่ส่งสัญญาณไปยังไขสันหลัง โดปามีนและกรดกลูตามิก (แต่ยังรวมถึงสารสื่อประสาทและนิวโรเปปไทด์อื่นๆ) ในนิวเคลียสพาราเวนทริคูลาร์ยังกระตุ้นเซลล์ประสาทออกซิโทซินที่ส่งสัญญาณไปยังบริเวณเวนทรัลเทกเมนทัล ซึ่งจะกระตุ้นเซลล์ประสาทโดปามีนเมโซลิมบิกที่ส่งสัญญาณไปยังนิวเคลียสแอคคัมเบนส์ ปรับเปลี่ยนแรงจูงใจทางเพศและการให้รางวัล โดปามีนที่ถูกปล่อยออกมาในนิวเคลียสแอคคัมเบนส์ (NAs) จะกระตุ้นเส้นทางประสาทที่ยังไม่เป็นที่รู้จัก ซึ่งจะเพิ่มกิจกรรมของเซลล์ประสาทโดปามีนในไฮโปทาลามัส (ที่มาจากกลุ่ม A13-A14 ของ Dahlstrom และ Fuxe) และส่งผลต่อเซลล์ประสาทออกซิโทซิน รวมถึงเซลล์ประสาทที่ส่งสัญญาณไปยังไขสันหลัง ทำให้เกิดการแข็งตัวของอวัยวะเพศชาย วงจรนี้อาจถูกกระตุ้นโดยออกซิโทซินที่ฉีดเข้าไปไม่เพียงแต่ในบริเวณเวนทรัลเทกเมนทัลส่วนท้ายเท่านั้น แต่ยังรวมถึงในเวนทรัลซับบิคูลัมและอะมิกดาลาด้วย ซึ่งได้รับเส้นประสาทออกซิโทซินจากนิวเคลียสพาราเวนทริคูลาร์ อาจผ่านทางเส้นประสาทกลูตาเมตโดยตรงหรือโดยอ้อมไปยังบริเวณเวนทรัลเทกเมนทัล ทำให้เกิดการปรับเปลี่ยนทั้งแรงจูงใจทางเพศและการแข็งตัวของอวัยวะเพศชาย สุดท้ายนี้ วงจรข้างต้นอาจถูกกระตุ้นด้วยสิ่งเร้าทางเพศและฟีโรโมนได้เช่นกัน เนื่องจากโดปามีนและกรดกลูตามิกนอกเซลล์จะเพิ่มขึ้นในนิวเคลียสพาราเวนทริคูลาร์ (และในบริเวณพรีออปติกส่วนกลาง) ในระหว่างการแข็งตัวของอวัยวะเพศแบบไม่สัมผัสและการร่วมเพศที่เกิดจากฟีโรโมน (สำหรับข้อมูลอ้างอิงที่เกี่ยวข้อง โปรดดูรายการอ้างอิง)
กิตติกรรมประกาศงานนี้ได้รับการสนับสนุนบางส่วนโดยได้รับทุนจากกระทรวงอิตาลีของมหาวิทยาลัยและการวิจัยเพื่อ AA และ MRM
อ้างอิง
แอนเดอร์สัน, KE, 2001 เภสัชวิทยาของการแข็งตัวของอวัยวะเพศชาย Pharmacol รายได้ 53, 417-450 Argiolas, A. , 1994 ไนตริกออกไซด์เป็นสื่อกลางในการสร้างอวัยวะเพศชาย เภสัชวิทยาประสาทวิทยา 33, 1339-1344 Argiolas, A. , 1999 Neuropeptides และพฤติกรรมทางเพศ Neurosci Biobehav รายได้ 23, 1127-1142 Argiolas, A. , Gessa, GL, 1991 ฟังก์ชั่นกลางของออกซิโตซิน Neurosci Biobehav รายได้ 15, 217-231 Argiolas, A. , Melis, MR, 1995 Neuromodulation ของอวัยวะเพศชายแข็งตัว: ภาพรวมของบทบาทของสารสื่อประสาทและ neuropeptides Prog Neurobiol 47, 235-255 Argiolas, A. , Melis, MR, 2004 บทบาทของอุ้งดูซิและนิวเคลียส paraventricular ในพฤติกรรมทางเพศของสัตว์เลี้ยงลูกด้วยนมเพศชาย Physiol Behav 83, 309-317 Argiolas, A. , Melis, MR, 2005 การควบคุมส่วนกลางของการแข็งตัวของอวัยวะเพศชาย: บทบาทของนิวเคลียส paraventricular ของ hypothalamus Prog Neurobiol 76, 1-21 Argiolas, A. , Collu, M. , Gessa, GL, Melis, MR, Serra, G. , 1988 ศัตรูออกซิโตซิน d (CH2) 5Tyr (Me) -Orn8-vasotocin antagonizes พฤติกรรมการมีเพศสัมพันธ์ของผู้ชายในหนู อี J. Pharmacol 149, 389-392 Argiolas, A. , Collu, M. , D'Aquila, P. , Gessa, GL, Melis, MR, Serra, G. , 1989 การกระตุ้น Apomorphine ของพฤติกรรมการมีเพศสัมพันธ์ของผู้ชายถูกป้องกันโดยปฏิปักษ์ oxytocin d (CH2) 5Tyr (Me) - Orn8-vasotocin ในหนู Pharmacol Biochem Behav 33, 81-83 Argiolas, A. , Melis, MR, Gessa, GL, 1985 Intraventricular oxytocin ทำให้เกิดการหาวและการแข็งตัวของอวัยวะเพศในหนู อี J. Pharmacol 117, 395-396 Argiolas, A. , Melis, MR, Gessa, GL, 1986 ออกซิโตซิน: การกระตุ้นอวัยวะเพศชายที่มีศักยภาพอย่างมากและการหาวในหนูตัวผู้ อี J. Pharmacol 130, 265-272 Argiolas, A. , Melis, MR, Mauri, A. , Gessa, GL, 1987a รอยโรคนิวเคลียส Paraventricular ป้องกันการหาวและการแข็งตัวของอวัยวะเพศที่เกิดจาก apomorphine และ oxytocin แต่ไม่ได้โดย ACTH ในหนู สมอง Res 421, 349-352 Argiolas, A. , Melis, MR, Vargiu, L. , Mauri, A. , Gessa, GL, 1987b d (CH2) 5Tyr (Me) -Orn8-vasotocin, ศัตรูที่มีศักยภาพในการออกซิโตซิน, ต่อต้านการแข็งตัวของอวัยวะเพศชายและการทำหมันที่เกิดจาก oxytocin และ apomorphine อี J. Pharmacol 134, 221-224 Argiolas, A. , Melis, MR, Stancampiano, R. , Gessa, GL, 1990 _-Conotoxin ป้องกัน apomorphine และ oxytocin ที่เกิดจากการแข็งตัวของอวัยวะเพศชายและการหาวในหนูตัวผู้ Pharmacol Biochem Behav 37, 253-257 Arletti, R. , Bertolini, A. , 1985 ออกซิโตซินช่วยกระตุ้นพฤติกรรม lordosis ในหนูเพศเมีย Neuropeptides 6, 247-255 Arletti, R. , Bazzani, C. , Castelli, M. , Bertolini, A. , 1985 ออกซิโตซินช่วยเพิ่มประสิทธิภาพการทำงานร่วมของเพศชายในหนู ฮ่อม Behav 19, 14-20 Arletti, R. , Benelli, A. , Bertolini, A. , 1990 พฤติกรรมทางเพศของหนูเพศผู้จะถูกกระตุ้นโดยอุ้งอุ้ง อี J. Pharmacol 179, 377-382 Arletti, R. , Calzà, L. , Giardino, L. , Benelli, A. , Cavazzutti, E. , Bertolini, A. , 1997 ความอ่อนแอทางเพศสัมพันธ์กับการลดการผลิตออกซิโตซินและการเพิ่มขึ้นของเปปไทด์ opioid ในนิวเคลียส paraventricular ของ hypothalamus Neurosci เลทท์ 233, 65-68 Bancila, M. , Giuliano, F. , Rampin, O. , Mailly, P. , Brisorgueil, MJ, Clas, A. , Verge, D. , 2002 หลักฐานสำหรับการฉายโดยตรงจากนิวเคลียส paraventricular ของมลรัฐที่จะสมมุติเซลล์ serotoninergic สมมุติของนิวเคลียส paragigantocellularis เกี่ยวข้องกับการควบคุมการแข็งตัวของหนูในหนู อี J. Neurosci 16, 1240-1249 Burnett, AL, Lowenstein, CJ, Bredt, DS, ช้าง, TSK, Snyder, SH, 1992 ไนตริกออกไซด์: ตัวกลางทางสรีรวิทยาของการแข็งตัวของอวัยวะเพศชาย วิทยาศาสตร์ 257, 401-403 Baskerville, TA, ดักลาส, AJ, 2008 ปฏิสัมพันธ์ระหว่างโดปามีนและออกซิโตซินในการควบคุมพฤติกรรมทางเพศ Prog สมอง Res 170, 277-289 Baskerville, TA, Allard, J. , Wayman, C. , Douglas, AJ, 2009 ปฏิสัมพันธ์ระหว่างโดปามีน - ออกซิโตซินในการแข็งตัวของอวัยวะเพศชาย อี J. Neurosci 30, 2151-2164 Benelli, A. , Bertolini, A. , Poggioli, R. , Cavazzutti, E. , Calzà, L. , Giardino, L. , Arletti, R. , 1995 ไนตริกออกไซด์เกี่ยวข้องกับพฤติกรรมทางเพศของหนูเพศชาย อี J. Pharmacol 294, 505-510 Bernabè, J. , Rampin, O. , Sachs, BD, Giuliano, F. , 1999 Intracavernous pressure ระหว่างการก่อสร้างในหนู: วิธีการแบบบูรณาการตามการบันทึก telemetric am J. Physiol 276, R441-R449 Bitner, RS, Nikkel, AL, Otte, S. , Martino, B. , Barlow, EH, Bhatia, P. , Stewart, AO, Brioni, JD, ฉูดฉาด, MW, Moreland, RB, 2006 Dopamine D4 รับสัญญาณในนิวเคลียส hypothalamic หนู paraventricular หนู: หลักฐานของการมีเพศสัมพันธ์ตามธรรมชาติที่เกี่ยวข้องกับการเหนี่ยวนำของยีนในช่วงต้นทันทีและ mitogen เปิดใช้งานโปรตีนไคเนส phosphorylation เภสัชวิทยาประสาทวิทยา 50, 521-531 Brioni, JD, Moreland, RB, Cowart, M. , Hsieh, GC, Stewart, AO, Hedlund, P. , Donnelly-Roberts, DL, Nakane, M. , Lynch 3rd., J. , Kolasa, T. , Polakowski , JS, Osinski, MA, Marsh, K. , Andersson, KE, ซัลลิแวน, JP, 2004 การเปิดใช้งานตัวรับ dopamine D4 โดย ABT-724 ทำให้เกิดการแข็งตัวของอวัยวะเพศชายในหนู พร Natl Acad วิทย์ สหรัฐอเมริกา 101, 6758-6763 Buijs, RM, 1978 ภายใน - และเสริม vasopressin vasopressin และทางเดิน oxytocin ในหนู เซลล์เนื้อเยื่อ Res 192, 423-435 Buijs, RM, Geffard, M. , Pool, CW, Hoorneman, EMD, 1984 การปกคลุมด้วยโดปามิคกี้ของนิวเคลียส Supraoptic และ paraventricular การศึกษาด้วยกล้องจุลทรรศน์แสงและอิเล็กตรอน สมอง Res 323, 65-72 Caldwell, JD, Prange, AJ, Pedersen, CA, 1986 ออกซิโตซินช่วยในการเปิดกว้างทางเพศของหนูเพศเมียที่ได้รับฮอร์โมนเอสโตรเจน Neuropeptides 7, 175-189 คาเมรอน, JL, Pomerantz, SM, Layden, LM, Amico, JA, 1992 การกระตุ้นโดปามีนจากความเข้มข้นของออกซิโตซินในพลาสมาของลิงชายและหญิงโดย apomorphine และตัวเอกผู้รับ D2 J. Clin Endocrinol Metab 75, 855-860 Canteras, NS, Simerly, RB, Swanson, LW, 1995 การจัดทำประมาณการจากส่วนกลางของ amygdala: การศึกษา PHAL ในหนู J. คอมพ์ Neurol 360, 213-245 Carmichael, MS, ฮัมเบิร์ต, R. , Dixen, J. , Palmisano, G. , Greeleaf, W. , Davidson, JM, 1987 พลาสมาออกซิโตซินเพิ่มขึ้นในการตอบสนองทางเพศของมนุษย์ J. Clin Endocrinol Metab 64, 27-31 คาร์เตอร์, CS, 1992 ออกซิโตซินและพฤติกรรมทางเพศ Neurosci Biobehav รายได้ 16, 131-144 คาร์เตอร์, CS, Lederhendler, II, Kirkpatrick, B. , 1997 ชีววิทยาแบบโต้ตอบของสังกัดภาคผนวกของสถ 807. สถาบันวิทยาศาสตร์แห่งนิวยอร์กนิวยอร์ก Castelli, MP, Piras, AP, Melis, T. , Succu, S. , Sanna, F. , Melis, MR, Collu, S. , Ennas, MG, Diaz, G. , Mackie, K. , Argiolas, A. , 2007 Cannabinoid ตัวรับ CB1 ในนิวเคลียส paraventricular และการควบคุมส่วนกลางของการแข็งตัวของอวัยวะเพศชาย: อิมมูโนไซโตเคมี, ออโตเรดิโอกราฟฟีและการศึกษาพฤติกรรม ประสาทวิทยาศาสตร์ 147, 197-206 เฉิน, KK, ช้าง, LS, 2003 ผลของ agonists ตัวรับกรดอะมิโน excitatory ต่อการแข็งตัวของอวัยวะเพศชายหลังจากการบริหารเข้าไปในนิวเคลียส paraventricular ของมลรัฐในมลรัฐหนู J. Urol 62, 575-580 เฉิน, KK, ชาน, JYH, ช้าง, LS, เฉิน, มอนแทนา, ช้าง, SHH, 1992 การกระตุ้นของการแข็งตัวของอวัยวะเพศชายหลังจากการเปิดใช้งานของการก่อ hippocampal ในหนู Neurosci เลทท์ 141, 218-222 เฉิน, KK, ชาน, JYH, ช้าง, LS, 1999 Dopaminergic neurotransmission ที่นิวเคลียส paraventricular ของมลรัฐในการควบคุมกลางของการแข็งตัวของอวัยวะเพศชายในหนู J. Urol 162, 237-242 Collins, GT, Truccone, A. , Haji-Abdi, F. , Newman, AH, Grundt, P. , ข้าว, KC, สามี, SM, โลภ, BM, Enguehard-Gueiffer, C. , Gueiffer, A. , เฉิน , J. , Wang, S. , Katz, JL, Grandy, DK, Sunahara, RK, วูดส์, JH, 2009 Pro-erectile effect ของ agonists ที่มีลักษณะคล้าย dopamineD2 นั้นได้รับการไกล่เกลี่ยโดยตัวรับ D3 ในหนูและหนู J. Pharmacol ประสบการณ์ Ther 329, 210-217 Coolen, LM, Allard, J. , Truitt, WA, McKenna, KE, 2004 ศูนย์กลางการควบคุมการหลั่ง Physiol Behav 83, 203-215 Cui, SS, Bowen, RC, Gu, GB, Hannesson, BK, Yu, PH, Zhang, X. , 2001 การป้องกันอาการถอน cannabinoid โดยลิเธียม: การมีส่วนร่วมของการเปิดใช้งานเซลล์ประสาท oxytocinergic J. Neurosci 21, 9867-9876 Dahlstrom, A. , Fuxe, K. , 1964 หลักฐานการมีอยู่ของเซลล์ประสาทที่ประกอบด้วย monoamine ในระบบประสาทส่วนกลาง I. การสาธิตของ monoamines ในเซลล์ของเซลล์ประสาทสมอง Acta Physiol Scand 62 (Suppl. 232), 1-54 Depoortère, R. , Bardin, L. , Rodrigues, M. , Abrial, E. , Aliaga, M. , Newman-Tancredi, A. , 2009 การแข็งตัวของอวัยวะเพศชายและการหาวที่เกิดจากตัวรับโดปามีน D2 เหมือนตัวเอกในหนู: อิทธิพลของความเครียดและการมีส่วนร่วมของโดพามีน D2 แต่ไม่ใช่ตัวรับ D3 และ D4 Behav Pharmacol 20, 303-311 Domes, G. , Heinrichs, M. , Buchel, C. , Braus, DF, Herpertz, SC, 2007 ออกซิโตซินลดการตอบสนองของ amygdala ต่อใบหน้าอารมณ์โดยไม่คำนึงถึงความจุ Biol จิตเวชศาสตร์ 62, 11871190 Dominguez, J. , Riolo, JV, Xu, Z. , Hull, ME, 2001 ระเบียบโดย amygdala อยู่ตรงกลางของการมีเพศสัมพันธ์และการปล่อยโดพามีนอยู่ตรงกลาง J. Neurosci 21, 349-355 Donaldson, ZR, Young, LJ, 2009 ออกซิโตซิน, vasopressin และ neurogenetics ของสังคม วิทยาศาสตร์ 322, 900-904 Eaton, RG, Markowski, VF, Lumley, LA, Thompson, JT, โมเสส, J. , Hull, EM, 1991 ผู้รับ D2 ในนิวเคลียส paraventricular ควบคุมการตอบสนองที่อวัยวะเพศและการมีเพศสัมพันธ์ในหนูชาย Pharmacol Biochem Behav 39, 177-181 Ebner, K. , Bosch, OJ, Krömer, SA, Singewald, N. , Neumann, ID, 2005 การปลดปล่อยออกซิโตซินใน amygdala ส่วนกลางของหนูช่วยปรับพฤติกรรมการจัดการกับความเครียดและการปลดปล่อยกรดอะมิโนออกฤทธิ์ Neuropsychopharmacology 30, 223-230 Enguehard-Gueiffier, C. , Hübner, H. , El Hakmaoui, A. , Allouchi, H. , Gmeiner, P. , Argiolas, A. , Melis, MR, Gueiffier, A. , 2006 2 - [(4-Phenylpiperazin-1-yl) methyl] imidazo (di) azines เป็น D4- ลิแกนด์ที่เลือกไว้ การเหนี่ยวนำของอวัยวะเพศชายแข็งตัวโดย 2- [4- (2-methoxyphenyl) piperazin-1-ylmethyl] imidazo [1,2-a] pyridine (PIP3EA) J. Med Chem 49, 3938-3947 Everitt, BJ, 1990 แรงจูงใจทางเพศ: การวิเคราะห์ระบบประสาทและพฤติกรรมของกลไกการตอบสนองต่อการตอบสนองต่อความอยากอาหารและ copulatory หนูเพศผู้ Neurosci Biobehav รายได้ 14, 217-232 Fibiger, HC, Phillips, AG, 1988 Mesocorticolimbic ระบบโดปามีนและรางวัล แอน N. Y. Acad วิทย์ 5, 206-215 ฝรั่งเศส, SJ, Totterdell, S. , 2003 แต่ละนิวเคลียส accumbens - ฉายเซลล์ประสาทได้รับทั้ง amygdala basolateral และอวัยวะย่อยหน้าท้องโดยเฉพาะอย่างยิ่งในหนู ประสาทวิทยาศาสตร์ 119, 19-31 954 MR Melis, A. Argiolas / ประสาทวิทยาศาสตร์และชีวจิตรีวิว 35 (2011) 939-955 Freund-Mercier, MJ, Richard, P. , 1981 ผลการกระตุ้นของการฉีดสารออกซิโตซินในช่องปากต่อการขับน้ำนมออกในหนู Neurosci เลทท์ 23, 193-198 Freund-Mercier, MJ, Richard, P. , 1984 หลักฐานทางอิเล็กโทรวิทยาสำหรับการควบคุมความสะดวกของเซลล์อุ้งอุ้งโดยอุ้งในระหว่างการดูดนมในหนู J. Physiol (Lond.) 352, 447-466 Freund-Mercier, MJ, Stoeckel, ME, 1995 ตัวรับสัญญาณ Somatodendritic บนเซลล์ประสาทออกซีโตซิน ใน: Ivell, R. , Russel, JA (บรรณาธิการ), ออกซิโตซิน, แนวทางเซลล์และโมเลกุลในการแพทย์และการวิจัย Adv ประสบการณ์ Med Biol., 365 Plenum Press, New York และ London, pp. 185 194- Freund-Mercier, MJ, Stoeckel, ME, Palacios, JM, Pazos, JM, Richard, PH, Porte, A. , 1987 ลักษณะทางเภสัชวิทยาและการกระจายทางกายวิภาคของ 3H oxytocin ที่มีผลผูกพันในสมองหนู Wistar ที่ศึกษาโดยการถ่ายภาพอัตโนมัติ ประสาทวิทยาศาสตร์ 20, 599-614 Giuliano, F. , Rampin, O. , 2000 การควบคุมกลางของการแข็งตัวของอวัยวะเพศชาย Neurosci Biobehav รายได้ 24, 517-533 Giuliano, F. , Allard, J. , 2001 โดปามีนและการทำงานทางเพศ int J. Res ความอ่อนแอ 13 (Suppl. 3), 18-28 Giuliano, F. , Rampin, O. , 2004 การควบคุมระบบประสาทของการแข็งตัว Physiol Behav 83, 189-201 Giuliano, F. , Bernabè, J. , McKenna, KE, Longueville, F. , Rampin, O. , 2001 ผลกระทบหลังออกซีเดติกของไขสันหลังในหนูที่ได้รับยาสลบ กำลังเจ Physiol regul integ คอมพ์ Physiol 280, R1870-R1877 ไปที่, Y. , ปลอดหนี้, AA, 2005 การปรับโดปามิเนอร์จิคของแรงขับของ limbic และ cortical ของนิวเคลียส accumbens ในพฤติกรรมที่มุ่งไปยังเป้าหมาย ชัยนาท Neurosci 8, 805-812 Hawthorn, J. , Ang, VT, Jenkins, JS, 1985 ผลของรอยโรคในนิวเคลียส paraventricular, supraoptic และ suprachiasmatic nucle ต่อ vasopressin และ oxytocin ในสมองหนูและไขสันหลัง สมอง Res 346, 51-57 Heier, RF, Dolak, LA, Duncan, JN, Hyslop, DK, Lipton, MF, มาร์ติน, LJ, Mauragis, MA, Piercey, MF, Nichols, NF, Schreur, PJ, สมิ ธ , MW, Moon, MW, 1997 การสังเคราะห์และกิจกรรมทางชีวภาพของ (R) -5,6-dihydro-N, N-dimethyl-4H-imidazo [4,5,1-ij] quinolin-5-amine) และสารของมัน J. Med Chem 40, 639-646 Hsieh, GC, Hollingsworth, PR, Martino, B. , Chang, R. , Terranova, MA, O'Neill, AB, Lynch, JJ, Moreland, RB, Donnelly-Roberts, DL, Kolasa, T. , Mikusa, JP , McVey, JM, Marsh, KC, Sullivan, JP, Brioni, JD, 2004 กลไกกลางที่ควบคุมการแข็งตัวของอวัยวะเพศชายในหนูที่มีสติ: ระบบโดปามีนซึ่งเกี่ยวข้องกับผลข้างเคียงของ apomorphine J. Pharmacol ประสบการณ์ Ther 308, 330-338 Huang, PL, Dawson, TM, Bredt, DS, สไนเดอร์, SH, ฟิชแมน, MC, 1993 การหยุดชะงักของเป้าหมายของยีนไนตริกออกไซด์ของเซลล์ประสาท เซลล์ 75, 1273-1286 Huber, D. , Veinante, P. , Stoop, R. , 2005 Vasopressin และ oxytocin กระตุ้นประชากรของเซลล์ประสาทที่แตกต่างกันใน amygdala ส่วนกลาง วิทยาศาสตร์ 308, 245-248 ฮัลล์, EM, วอร์เนอร์, RK, Bazzett, TJ, Eaton, RC, ทอมป์สัน, JT, 1989 อัตราส่วน D2 / D1 ในพื้นที่ preoptic อยู่ตรงกลางมีผลต่อการมีเพศสัมพันธ์ของหนูเพศผู้ J. Pharmacol ประสบการณ์ Ther 251, 422-427 ฮัลล์, EM, Du, J. , Lorrain, DS, Matuszewich, L. , 1995 โดปามีนที่มีเซลล์เป็นพิเศษในบริเวณ preoptic อยู่ตรงกลาง: ความหมายสำหรับแรงจูงใจทางเพศและการควบคุมฮอร์โมนของการมีเพศสัมพันธ์ J. Neurosci 15, 7465-7471 ฮัลล์, EM, Meisel, RL, Sachs, BD, 2002 พฤติกรรมทางเพศชาย ใน: Pfaff, DW, Arnold, AP, Etgen, AM, Fahrbach, SE, Rubin, RT (ชั้นเลิศ) ฮอร์โมนสมองและพฤติกรรม นักวิชาการสื่อมวลชนนิวยอร์ก pp 3 137- Hurlemann, R. , Patin, A. , Onur, OA, Cohen, MX, Baumgartner, T. , Metzler, S. , Dziobek, I. , Gallinat, J. , Wagner, M. , Maier, W. , Kendrick, KM, 2010 ออกซิโตซินช่วยเพิ่มการเรียนรู้ที่ขึ้นอยู่กับ amygdala เสริมสร้างสังคมและการเอาใจใส่อารมณ์ในมนุษย์ J. Neurosci 30, 4999-5007 Ivell, R. , Russel, JA, 1995 ออกซิโตซิน: แนวทางเซลล์และโมเลกุลทางการแพทย์และการวิจัย ความก้าวหน้าในการทดลองและชีววิทยาการแพทย์ 395. กด Plenum นิวยอร์ก ตวัด, AE, Domesick, VB, 1982 การกระจายของการฉายภาพจากการก่อตัวของฮิปโปแคมปัสไปสู่นิวเคลียส accumbens ในหนู: การศึกษาเพอร์ริดิเดอเรเตอร์ anterograde- และ retrograde-horseradish ประสาทวิทยาศาสตร์ 7, 2321-2335 Kimura, Y. , Naitou, Y. , Wanibuchi, F. , Yamaguchi, T. , 2008 การเปิดใช้งานตัวรับ 5-HT (2C) เป็นกลไกที่พบโดยทั่วไปเกี่ยวกับผลข้างเคียงของ apomorphine, oxytocin และ melanotan-II ในหนู อี J. Pharmacol 589, 157-162 Kondo, Y. , Sachs, BD, Sakuma, Y. , 1998 ความสำคัญของ amygdala อยู่ตรงกลางในการสร้างอวัยวะเพศชายหนูปรากฏโดยสิ่งเร้าระยะไกลจากหญิง estrous Behav สมอง Res 91, 215-222 Kovacs, GL, Sarnyai, Z. , Szabo, G. , 1998 ออกซิโตซินและการติดยาเสพติด: ความคิดเห็น Psychoneuroendocrinology 23, 945-962 Lee, HJ, Macbeth, AH, Pagani, JH, Scott Young 3rd, W. , 2009 ออกซิโตซิน: ผู้อำนวยความสะดวกที่ยอดเยี่ยมของชีวิต Prog Neurobiol 88, 127-151 Lindvall, O. , Bjorklund, A. , Skagerberg, G. , 1984 การคัดเลือก istochemical แบบเลือกทางเคมีของระบบเทอร์มิโดพามีนในหนูและดิออน: โทรศัพท์: หลักฐานใหม่สำหรับการปกคลุมด้วยโดปามิคกี้ของนิวเคลียสของระบบประสาทในมลรัฐ hypothalamic สมอง Res 306, 19-30 Liu, YC, Salamone, JD, Sachs, BD, 1997 การตอบสนองทางเพศบกพร่องจากรอยโรคของนิวเคลียส paraventricular ของมลรัฐในหนูตัวผู้ Behav Neurosci 111, 1361-1367 Löber, S. , Tschammer, N. , Hübner, H. , Melis, MR, Argiolas, A. , Gmeiner, P. , 2009 กรอบการทำงานของ azulene เป็น bioisostere ที่แปลกใหม่: การออกแบบลิแกนด์ตัวรับ dopamine ที่มีศักยภาพทำให้เกิดการแข็งตัวของอวัยวะเพศชาย Chem Med Chem 4, 325-328 McCleskey, EW, Fox, AP, Feldman, DH, Cruz, LJ, Olivera, BM, Tsien, RW, Yoshikami, D. , 1987 _-Conotoxin: การปิดล้อมโดยตรงและถาวรของช่องทางเฉพาะประเภทแคลเซียมในเซลล์ประสาท แต่ไม่ใช่กล้ามเนื้อ Prot ชัยนาท Acad วิทย์ สหรัฐอเมริกา 84, 4327-4331 McKenna, KE, 2000 ข้อเสนอบางประการเกี่ยวกับองค์กรของระบบประสาทส่วนกลางในการควบคุมการแข็งตัวของอวัยวะเพศชาย Neurosci Biobehav รายได้ 24, 535-540 Marson, L. , McKenna, KE, 1992 บทบาทของ 5-hydroxytryptamine ในการยับยั้งการเกิดปฏิกิริยาตอบสนองทางกระดูกสันหลัง ประสบการณ์ สมอง Res 88, 313-318 Marson, L. , McKenna, KE, 1996 กลุ่มเซลล์ระบบประสาทส่วนกลางมีส่วนร่วมในการควบคุมกล้ามเนื้อ ischiocavernosus และ bulbospongiosus: การศึกษาการติดตาม transneuronal โดยใช้ pseudorabies virus J. คอมพ์ Neurol 374, 161-179 Meisel, RL, Sachs, BD, 1994 สรีรวิทยาของพฤติกรรมทางเพศชาย ใน: Knobil, E. , Neil, J. (บรรณาธิการ), สรีรวิทยาของการสืบพันธุ์, บทที่ 2 รุ่นที่สอง Raven Press, New York, pp. 3 96- Melin, P. , Kihlstrom, JE, 1963 อิทธิพลของอุออกซิโตซินต่อพฤติกรรมทางเพศในกระต่ายชาย. ต่อมไร้ท่อ 73, 433-435 Melis, MR, Argiolas, A. , 1995a โดปามีนและพฤติกรรมทางเพศ Neurosci Biobehav รายได้ 19, 19-38 Melis, MR, Argiolas, A. , 1995b ผู้บริจาคไนตริกออกไซด์ทำให้เกิดอวัยวะเพศชายแข็งตัวและหาวเมื่อฉีดเข้าไปในระบบประสาทส่วนกลางของหนูเพศผู้ อี J. Pharmacol 294, 1-9 Melis, MR, Argiolas, A. , 2003 Central oxytocinergic neurotransmission: เป้าหมายยาสำหรับการรักษาโรคหย่อนสมรรถภาพทางเพศ psycogenic ฟี้ เป้าหมายยาเสพติด 4, 55-66 Melis, MR, Argiolas, A. , Gessa, GL, 1986 การหาวของอุ้งและการแข็งตัวของอวัยวะเพศชาย: การกระทำในสมอง สมอง Res 398, 259-265 Melis, MR, Argiolas, A. , Gessa, GL, 1987 Apomorphine ที่เกิดขึ้นหาวและการแข็งตัวของอวัยวะเพศชาย: เว็บไซต์ของการดำเนินการในสมอง สมอง Res 415, 98-104 Melis, MR, Argiolas, A. , Gessa, GL, 1989a Apomorphine เพิ่มระดับพลาสโมออกซินในพลาสมาในหนู Neurosci เลทท์ 98, 351-355 Melis, MR, Argiolas, A. , Gessa, GL, 1989b หลักฐานที่แสดงว่า apomorphine ทำให้อวัยวะเพศชายแข็งตัวและหาวโดยการปล่อยออกซิโตซินในระบบประสาทส่วนกลาง อี J. Phamacol 164, 565-570 Melis, MR, Argiolas, A. , Stancampiano, R. , Gessa, GL, 1990 ผลของ apomorphine ต่อระดับความเข้มข้นของอุ้งในสมองและพลาสมาของหนูเพศผู้ อี J. Pharmacol 182, 101-107 Melis, MR, Mauri, A. , Argiolas, A. , 1994a Apomorphine และ oxytocin ที่เกิดจากการแข็งตัวของอวัยวะเพศชายและการหาวในหนูตัวผู้ที่ยังอยู่ในสภาพสมบูรณ์และตอน: ผลของสเตียรอยด์ทางเพศ Neuroendocrinology 59, 349-354 Melis, MR, Stancampiano, R. , Argiolas, A. , 1994b การแข็งตัวของอวัยวะเพศชายและการทำท่าหาวที่เกิดจากการฉีด NMDA paraventricular มีการไกล่เกลี่ยโดย oxytocin Pharmacol Biochem Behav 48, 203-207 Melis, MR, Stancampiano, R. , Argiolas, A. , 1994c การป้องกันโดย NG-nitro-l-arginine methyl ester ของการแข็งตัวของอวัยวะเพศชายที่เกิดจาก apomorphine และ oxytocin ที่เกิดขึ้นและหาว: เว็บไซต์ของการกระทำในสมอง Pharmacol Biochem Behav 48, 799-804 Melis, MR, Succu, S. , Argiolas, A. , 1996 agonists Dopamine เพิ่มการผลิตไนตริกออกไซด์ในนิวเคลียส paraventricular ของมลรัฐ: ความสัมพันธ์กับการแข็งตัวของอวัยวะเพศชายและทำท่าหาว อี J. Neurosci 8, 2056-2063 Melis, MR, Succu, S. , Iannucci, U. , Argiolas, A. , 1997 ออกซิโตซินเพิ่มการผลิตไนตริกออกไซด์ในนิวเคลียส paraventricular ของมลรัฐ: ความสัมพันธ์กับการแข็งตัวของอวัยวะเพศชายและทำท่าหาว เร็ก เปปไทด์ 69, 105-112 Melis, MR, Succu, S. , Mauri, A. , Argiolas, A. , 1998 การผลิตไนตริกออกไซด์จะเพิ่มขึ้นในนิวเคลียส paraventricular ของ hypothalamus ของหนูเพศผู้ในระหว่างการแข็งตัวของอวัยวะเพศชายแบบไม่สัมผัสและการมีเพศสัมพันธ์ อี J. Neurosci 10, 1968-1974 Melis, MR, Spano, MS, Succu, S. , Argiolas, A. , 1999a คู่ต่อสู้ oxytocin d (CH2) 5Tyr (Me) 2-Orn8-vasotocin ลดการแข็งตัวของอวัยวะเพศชายแบบไม่สัมผัสในหนูตัวผู้ Neurosci เลทท์ 265, 171-174 Melis, MR, Succu, S. , Spano, MS, Argiolas, A. , 1999b มอร์ฟีนฉีดเข้าไปในนิวเคลียส paraventricular ของมลรัฐป้องกันการแข็งตัวของอวัยวะเพศที่ไม่ติดต่อและการมีเพศสัมพันธ์บั่นทอน: การมีส่วนร่วมของไนตริกออกไซด์ อี J. Neurosci 11, 1857-1864 Melis, MR, Spano, MS, Succu, S. , Argiolas, A. , 2000 ผลของกรดอะมิโน excitatory, โดปามีนและออกซิโตซินคู่อริต่อการแข็งตัวของอวัยวะเพศชายและการผลิตไนตริกออกไซด์ paraventricular ในหนูตัวผู้ Behav Neurosci 114, 849-857 Melis, MR, Succu, S. , Mascia, MS, Cortis, L. , Argiolas, A. , 2003 โดปามีนเสริมเซลล์เพิ่มขึ้นในนิวเคลียส paraventricular ของหนูเพศผู้ในระหว่างกิจกรรมทางเพศ อี J. Neurosci 17, 1266-1272 Melis, MR, Succu, S. , Mascia, MS, Argiolas, A. , 2004a การเป็นปรปักษ์กันของ cannabinoid CB1 ตัวรับในนิวเคลียส paraventricular ของหนูตัวผู้ทำให้อวัยวะเพศชายแข็งตัว Neurosci เลทท์ 359, 17-20 Melis, MR, Succu, S. , Mascia, MS, Cortis, L. , Argiolas, A. , 2004b กรดอะมิโน excitatory พิเศษเซลล์เพิ่มขึ้นในนิวเคลียส paraventricular ของหนูเพศชายในระหว่างกิจกรรมทางเพศ: บทบาทหลักของ NDADA ผู้รับในการทำงานของอวัยวะเพศ อี J. Neurosci 19, 2569-2575 Melis, MR, Succu, S. , Mascia, MS, Argiolas, A. , 2005 PD-168,077, dopamine D4 receptor agonist ตัวเลือก, ทำให้อวัยวะเพศชายแข็งตัวเมื่อฉีดเข้าไปในนิวเคลียส paraventricular ของหนูตัวผู้ Neurosci เลทท์ 379, 59-62 Melis, MR, Succu, S. , Mascia, MS, Sanna, F. , Melis, T. , Succu, S. , Castelli, MP, Argiolas, A. , 2006a การสร้างอวัยวะเพศชายที่เกิดจาก SR 141716A ในหนูตัวผู้: การมีส่วนร่วมของกรดกลูตามิก paraventricular และไนตริกออกไซด์ เภสัชวิทยาประสาทวิทยา 50, 219-228 Melis, MR, Succu, S. , Sanna, F. , Mascia, MS, Melis, T. , Enguehard-Gueiffier, C. , Hubner, H. , Gmenier, P. , Gueiffier, A. , Argiolas, A. , 2006b PIP3EA และ PD168077 ตัวเลือก dopamine D4 receptor agonists สองตัวเลือกกระตุ้นอวัยวะเพศชายในอวัยวะเพศชาย: สถานที่และกลไกการออกฤทธิ์ในสมอง อี J. Neurosci 24, 2021-2030 Melis, MR, Melis, T. , Cocco, C. , Succu, S. , Sanna, F. , Pillolla, G. , Boi, A. , Ferri, GL, Argiolas, A. , 2007 ออกซิโตซินฉีดเข้าไปในพื้นที่หน้าท้องทำให้เกิดการแข็งตัวของอวัยวะเพศชายและเพิ่มโดปามีนเซลล์พิเศษในนิวเคลียส accumbens MR Melis, A. Argiolas / ประสาทวิทยาศาสตร์และชีวจิตรีวิว 35 (2011) 939-955 955 และนิวเคลียส paraventricular ของ hypothalamus ของหนูเพศผู้ อี J. Neurosci 26, 1026-1035 Melis, MR, Sanna, F. , Succu, S. , Zarone, P. , Boi, A. , Argiolas, A. , 2009a บทบาทของอ๊อกซิโทซินในระยะที่คาดหวังและการบริโภคของพฤติกรรมทางเพศของหนูเพศชาย ใน: Jastrow, H. , Feuerbach, D. (บรรณาธิการ), คู่มือการวิจัยอ๊อกซิซิน: การสังเคราะห์, การเก็บรักษาและการปลดปล่อย, การกระทำและรูปแบบยา Nova Publishers Inc, New York, USA, pp. 109 125- Melis, MR, Succu, S. , Sanna, F. , Boi, A. , Argiolas, A. , 2009b ออกซิโตซินฉีดเข้าไปในอวัยวะย่อยหน้าท้องหรือนิวเคลียสเยื่อหุ้มสมองหลังของ amygdala ทำให้อวัยวะเพศชายแข็งตัวและเพิ่มโดปามีนนอกเซลล์ในนิวเคลียสของหนูตัวผู้ อี J. Neurosci 30, 1349-1357 Melis, MR, Succu, S. , Cocco, C. , Caboni, E. , Sanna, F. , Boi, A. , Ferri, GL, Argiolas, A. , 2010 ออกซิโตซินทำให้อวัยวะเพศชายแข็งตัวเมื่อฉีดเข้าไปในอวัยวะย่อยในช่องท้อง: บทบาทของไนตริกออกไซด์และกรดกลูตามิก เภสัชวิทยาประสาทวิทยา 58, 1153-1160 Moreland, RB, Nakane, M. , Donnelly-Roberts, DL, Miller, LN, ช้าง, R. , Uchic, ME, Terranova, MA, Gubbins, EJ, Helfrich, RJ, Namovic, มอนแทนา, El-Kouhen, ของ ผู้เชี่ยวชาญ, JN, Brioni, JD, 2004 เภสัชวิทยาเปรียบเทียบของมนุษย์โดปามีน D (2) เปรียบเสมือนเซลล์รับที่มั่นคงคู่กับแคลเซียมฟลักซ์ผ่าน Galpha (qo5) Biochem Pharmacol 68, 761-772 Moos, F. , Freund-Mercier, MJ, Guerne, Y. , Guerne, JM, Stoeckel, ME, Richard, P. , 1984 การปลดปล่อยของอุ้งและ vasopressin โดยนิวเคลียส magnocellular ในหลอดทดลอง: ผลการอำนวยความสะดวกที่เฉพาะเจาะจงของออกซิโตซินในการเปิดตัวของตัวเอง J. Endocrinol 102, 63-72 Murphy, MR, Seckl, JR, Burton, S. , Checkley, SA, Lightman, SL, 1987 การเปลี่ยนแปลงในการหลั่ง oxytocin และ vasopressin ระหว่างกิจกรรมทางเพศในผู้ชาย J. Clin Endocrinol Metab 65, 738-741 Nishimori, K. , Young, LJ, Guo, Q. , Wang, Z. , Insel, TR, Matzuk, MM, 1996 ออกซิโตซินเป็นสิ่งจำเป็นสำหรับการพยาบาล แต่ไม่จำเป็นสำหรับการคลอดบุตรหรือพฤติกรรมการสืบพันธุ์ พร Natl Acad วิทย์ สหรัฐอเมริกา 93, 11699-11704 Patel, S. , อิสระ, S. , Chapman, KL, Emms, F. , Fletcher, AE, Knowles, M. , Marwood, R. , Mccallister, G. , Myers, J. , Curtis, J. , Kulagowski, JJ, Leeson, PD, Ridgill, M. , Graham, M. , Matheson, S. , Rathbone, D. , Watt, AP, Bristow, LJ, Rupniak, NM, Baskin, E. , Lynch, JJ, Ragan, CI , 1997 รายละเอียดทางชีววิทยาของ L 745,870 ตัวเลือกคัดสรรที่มีความสัมพันธ์สูงสำหรับตัวรับ dopamine D4 J. Pharmacol ประสบการณ์ Ther 283, 636-647 Pedersen, CA, Caldwell, JD, Jirikowski, GF, Insel, TR, 1992 ออกซิโตซินในพฤติกรรมทางเพศมารดาและสังคม, พงศาวดารของสถาบันวิทยาศาสตร์แห่งนิวยอร์ก 652. สถาบันวิทยาศาสตร์แห่งนิวยอร์กนิวยอร์ก Petrovic, P. , Kalisch, R. , นักร้อง, T. , Dolan, RJ, 2008 ออกซิโตซินลดการประเมินผลทางอารมณ์ของใบหน้าที่มีการปรับอากาศและกิจกรรมอะมิกดาลา J. Neurosci 28, 6607-6615 Pfaus, JG, Everitt, BJ, 1995 เภสัชวิทยาของพฤติกรรมทางเพศ ใน: Knobil, FE, Kupfer, DJ (บรรณาธิการ), Psychopharmacology: ความก้าวหน้ารุ่นที่สี่ Raven Press, New York, pp. 742 758- Rajfer, J. , Aronson, WJ, Bush, PA, Dorey, FJ, Ignarro, LJ, 1992 ไนตริกออกไซด์เป็นสื่อกลางในการผ่อนคลายของคลังข้อมูล corpus cavernosum เพื่อตอบสนองต่อการส่งผ่านของสารสื่อประสาทที่ไม่ใช่ adrenergic, nonchrenergic N. Engl J. Med 326, 90-94 Roeling, TAP, Van Erp, AMM, Meelis, W. , Kruk, MR, Veening, JG, 1991 ผลกระทบทางพฤติกรรมของ NMDA ที่ถูกฉีดเข้าสู่นิวเคลียส paraventricular นิวเคลียสของหนู สมอง Res 550, 220-224 Sachs, BD, 1997 การติดเชื้อปรากฏในหนูตัวผู้โดยมีกลิ่นหอมในอากาศจากตัวเมียที่เป็นสัด Physiol Behav 62, 921-924 Sachs, BD, 2000 วิธีการทางบริบททางสรีรวิทยาและการจำแนกประเภทของสมรรถภาพทางเพศ, สมรรถภาพทางเพศและความเร้าอารมณ์ทางเพศ Neurosci Biobehav รายได้ 24, 541-560 Sachs, BD, 2007 คำจำกัดความตามบริบทของการเร้าอารมณ์ทางเพศชาย ฮ่อม Behav 51, 569-578 Sanchez, F. , Alonso, JR, Arevalo, R. , Blanco, E. , Aijon, J. , Vazquez, R. , 1994 การอยู่ร่วมกันของ NADPH-diaphorase ร่วมกับ vasopressin และ oxytocin ในนิวเคลียสของเซลล์ประสาทส่วนปลายของหนู เซลล์เนื้อเยื่อ Res 276, 31-34 Sanna, F. , Succu, S. , Boi, A. , Melis, MR, Argiolas, A. , 2009 Phosphodiesterase type 5 inhibitors ช่วยให้การแข็งตัวของอวัยวะเพศชายในหนู: เป็นที่ตั้งของสมองและกลไกการออกฤทธิ์ J. เพศ Med 6, 2680-2689 Saphier, D. , Feldman, S. , 1987 ผลของการกระตุ้นผนังผนังและฮิปโปแคมปัสต่อเซลล์ประสาทนิวเคลียส paraventricular ประสาทวิทยาศาสตร์ 20, 749-755 Sato-Suzuki, I. , Kita, I. , Oguri, M. , Arita, H. , 1998 การตอบสนองหาวแบบตายตัวที่เกิดจากการกระตุ้นด้วยไฟฟ้าและเคมีของนิวเคลียส paraventricular ของหนู J. Neurophysiol 80, 2765-2775 Schuman, EM, Madison, DV, 1994 ไนตริกออกไซด์และฟังก์ชันซินแนทิก แอน รายได้ Neurosci 17, 153-183 สไนเดอร์, SH, 1992 ไนตริกออกไซด์: เป็นคนแรกในสารสื่อประสาทชนิดใหม่ วิทยาศาสตร์ 254, 494-496 Sofroniew, MV, 1983 Vasopressin และ oxytocin ในสมองของสัตว์เลี้ยงลูกด้วยนมและไขสันหลัง Trends Neurosci 6, 467-472 Sokoloff, P. , Schwartz, JC, 1995 นวนิยายโดปามีนผู้รับครึ่งปีต่อมา แนวโน้ม Pharmacol วิทย์ 16, 270-275 Southam, E. , Garthwaite, J. , 1993 เส้นทางสัญญาณการส่งสัญญาณ GMP - nitric ออกไซด์ - ไซโคลในสมองของหนู เภสัชวิทยาประสาทวิทยา 32, 1267-1277 Stancampiano, R. , Melis, MR, Argiolas, A. , 1994 การแข็งตัวของอวัยวะเพศชายและการหาวที่เกิดจาก Agonists 5-HT1c ในหนูตัวผู้: ความสัมพันธ์กับการแพร่เชื้อโดปามีเซอร์กิชและ อี J. Pharmacol 261, 149-155 Succu, S. , Mascia, MS, Sanna, F. , Melis, T. , Argiolas, A. , Melis, MR, 2006 cannabinoid ตัวรับ CB1 ปฏิปักษ์ SR 141716A ทำให้อวัยวะเพศชายแข็งตัวโดยการเพิ่มกรดกลูตามิกเซลล์พิเศษในเซลล์นิวเคลียส paraventricular ของหนูตัวผู้ Behav สมอง Res 169, 274-281 Succu, S. , Sanna, F. , Melis, T. , Boi, A. , Argiolas, A. , Melis, MR, 2007 การกระตุ้นของตัวรับโดปามีนในนิวเคลียส paraventricular ของ hypothalamus ของหนูตัวผู้ทำให้อวัยวะเพศชายแข็งตัวและเพิ่มโดปามีนเสริมเซลล์ในนิวเคลียส accumbens: การมีส่วนร่วมของอุ้งกลาง เภสัชวิทยาประสาทวิทยา 52, 1034-1043 Succu, S. , Sanna, F. , Cocco, C. , Melis, T. , Boi, A. , Ferri, GL, Argiolas, A. , Melis, MR, 2008 ออกซิโตซินก่อให้เกิดการแข็งตัวของอวัยวะเพศชายเมื่อฉีดเข้าไปในบริเวณหน้าท้องของหนูเพศผู้: บทบาทของไนตริกออกไซด์และวงจร GMP อี J. Neurosci 28, 813-821 Tanda, G. , Pontieri, FE, Di Chiara, G. , 1997 cannabinoids และเฮโรอีนเปิดใช้งานการส่งผ่านโดปามีน mesolimbic โดยกลไก mu1 opioid ตัวรับทั่วไป วิทยาศาสตร์ 276, 2048-2050 Tang, Y. , Rampin, O. , Calas, A. , Facchinetti, P. , Giuliano, F. , 1998 การปกคลุมด้วยออกซิเจนในซีโอโทติโนและเซโรโทนิกของนิวเคลียส lumbosacral ที่ระบุที่ควบคุมการแข็งตัวของอวัยวะเพศชายในหนูตัวผู้. ประสาทวิทยาศาสตร์ 82, 241-254 Theodosis, DT, 1985 เทอร์มินัลออกซิโตซินอิมมูเรียรอยด์ทำปฏิกิริยากับเซลล์ประสาท oxytocin ในนิวเคลียส supraoptic ธรรมชาติ (ลอนดอน) 313, 682-684 Tindall, JS, 1974 สิ่งเร้าที่ทำให้เกิดการปลดปล่อยของอุ้ง ใน: Geiger, SR, Knobil, E. , Sawyer, WH, Greef, R. , Astwood, EB (บรรณาธิการ), คู่มือสรีรวิทยา นิกาย. 7, ต่อมไร้ท่อ, ฉบับที่ IV สมาคมสรีรวิทยาอเมริกันวอชิงตันดี. ซี., pp 257 267- Torres, G. , Lee, S. , Rivier, C. , 1993 Ontogeny ของหนู hypothalamic ไนตริกออกไซด์ synthase และ colocalization ด้วย neuropeptides mol เซลล์ Neurosci 4, 155-163 Uhl-Bronner, S. , Waltisperger, E. , Martinez-Lorenzana, G. , Condes, LM, Freund-Mercier, MJ, 2005 การแสดงออกทางเพศสัณฐานวิทยาของไซต์ที่ถูกจับอุ้ง ประสาทวิทยาศาสตร์ 135, 147-154 Vaccari, C. , Lolait, SJ, Ostrowski, NL, 1998 เปรียบเทียบการกระจายตัวของ vasopressin V1b และ oxytocin receptor messenger ribonucleic acid ในสมอง ต่อมไร้ท่อ 139, 5015-5033 Van Den Pol, A. , 1991 immunoreactivity กลูตาเมตและ aspartate ในซอน presynaptic hypothalamic J. Neurosci 11, 2087-2101 Veronneau-Longueville, F. , Rampin, O. , Freund-Mercier, MJ, Tang, Y. , Calas, A. , Marson, L. , McKenna, KE, Stoeckel, ME, เบอนัวต์, G. , Giuliano, F. , 1999 ปกคลุมด้วยเส้นออกซิโตซินิกของนิวเคลียสอัตโนมัติควบคุมการแข็งตัวของอวัยวะเพศชายในหนู ประสาทวิทยาศาสตร์ 93, 1437-1447 Vincent, SR, Kimura, H. , 1992 การทำแผนที่ฮีสโตเคมีของไนตริกออกไซด์ synthase ในสมองหนู ประสาทวิทยาศาสตร์ 46, 755-784 แว็กเนอร์, CK, Clemens, LG, 1993 เส้นทางที่ประกอบด้วย Neurophysin จากนิวเคลียส paraventricular ของ hypothalamus ไปยังนิวเคลียสของมอเตอร์ dimorphic ทางเพศในไขสันหลังส่วนเอว J. คอมพ์ Neurol 336, 106-116 พระพุทธเจ้า, JT, Insel, TR, 1991 สถานะทางสังคมของลิงกระรอกเพศผู้กำหนดพฤติกรรมตอบสนองต่อการบริหารอุ้งอุ้งกลาง J. Neurosci 11, 2032-2038 ปรีชาญาณ RA, Rompre, P.-P. , 1989 โดปามีนสมองและรางวัล แอน รายได้ จิตวิทยา 40, 191-225 วิตต์, DM, Insel, TR, 1994 พฤติกรรมทางเพศของผู้ชายเปิดใช้งานโปรตีนคล้าย c-fos ในเซลล์ oxytocin ในนิวเคลียส paraventricular ของ hypothalamus J. Neuroendocrinol 6, 13-18 Witter, MP, 2006 การเชื่อมต่อของ subiculum ของหนู: ลักษณะภูมิประเทศที่สัมพันธ์กับการเรียงเป็นแนวและแนวราบ Behav Brain Res 174, 251-264 Woodruff, GN, Foster, AC, Gill, R. , Kemp, JA, วงศ์, EH, Iversen, LL, 1987 ปฏิกิริยาระหว่าง MK-801 และตัวรับสำหรับ N-methyl-d-aspartate: ผลที่ตามมาจากการทำงาน เภสัชวิทยาประสาทวิทยา 26, 903-909 Yamashita, H. , Shigeru, O. , Inenaga, K. , Kasai, M. , Uesugi, S. , Kannan, H. , Kaneko, T. , 1987 ออกซิโตซินส่วนใหญ่ตื่นเต้นเซลล์ประสาท oxytocin สมมุติในหนูหนู supraoptic นิวเคลียสในหลอดทดลอง สมอง Res 416, 364-368 Yells, DP, Hendricks, SE, Prendergast, MA, 1992 รอยโรคของนิวเคลียส paragigantocellularis: ผลต่อพฤติกรรมการผสมพันธุ์ในหนูตัวผู้ สมอง Res 596, 73-79 Young, WS, Shepard, E. , Amico, J. , Hennighausen, L. , LaMarca, ME, McKinney, C. , Ginns, EI, 1996 การขาดออกซิโตซินของเมาส์จะป้องกันการขับน้ำนมออก แต่ไม่ใช่ภาวะเจริญพันธุ์หรือการคลอด J. Neuroendocrinol 8, 847-854 Zahran, AR, Vachon, P. , Courtois, F. , Carrier, S. , 2000 เพิ่มขึ้นในความดันอวัยวะเพศชาย intracavernous หลังจากการฉีดของ agonists รับกรดอะมิโน excitatory ในนิวเคลียส paraventricular J. Urol 164, 1793-1797