Izohlar: Keyinchalik olib borilgan tadqiqotlar DeltaFosB-ning giyohvandlik va xulq-atvorga bog'liqlik uchun umumiy molekulyar kalit ekanligini aniqlaydi. Bu transkripsiya omili, ya'ni u qanday genlarni yoqish yoki o'chirishga ta'sir qiladi. Boshqa joylarda aytib o'tilganidek, giyohvand moddalar faqat oddiy mexanizmlarni o'g'irlashadi. Shuning uchun xulq-atvorga bog'liqlik mavjud bo'lishi mumkin emas degan fikr bema'ni.
Proc Natl Acad Sci AQSh A. 2001 sentyabr 25; 98 (20): 11042-11046.
doi: 10.1073 / pnas.191352698.
Erik J. Nestler *, Mishel Barrot va Devid Vt
Texasning janubi-g'arbiy tibbiyot markazi psixiatriya va neyroxirurgiya markazi, 5323 Harri Hines bulvari, Dallas, TX 75390-9070
mavhum
Giyohvandlikka qaramlikni tavsiflovchi ba'zi xulq-atvor anomaliyalarining uzoq davom etishi, asab genlarining ifodasini tartibga solish giyohvand moddalarning giyohvandlik holatini keltirib chiqarish jarayonida ishtirok etishi mumkinligini ko'rsatdi. Ko'proq dalillar shuni ko'rsatadiki, transkripsiya omili ΔFosB giyohvand moddalar miyada giyohvandlik fenotipiga hissa qo'shadigan nisbatan barqaror o'zgarishlarni keltirib chiqaradigan mexanizmlardan biridir. Transkripsiya omillarining Fos oilasining a'zosi bo'lgan ΔFosB , ko'plab giyohvand moddalarni takroriy qabul qilgandan so'ng, yadro akumbenslari va dorsal striatum (giyohvandlik uchun muhim bo'lgan miya mintaqalari) neyronlarining bir qismi ichida to'planadi. ΔFosBning shunga o'xshash to'planishi kompulsiv yugurishdan keyin sodir bo'ladi, bu ΔFosB ko'plab majburiy xatti-harakatlarga javoban to'planishi mumkinligini ko'rsatadi . Muhimi, ΔFosB o'zining ajoyib barqarorligi tufayli neyronlarda nisbatan uzoq vaqt saqlanib qoladi. Shuning uchun, ΔFosB giyohvand moddalar ta'siri to'xtaganidan keyin uzoq vaqt davom etadigan gen ifodasida o'zgarishlarni boshlashi va keyin saqlab turishi mumkin bo'lgan molekulyar mexanizmni ifodalaydi . ΔFosB yoki oqsilning dominant salbiy inhibitori haddan tashqari ifodalangan induktiv transgen sichqonlarda o'tkazilgan tadqiqotlar, ΔFosB giyohvand moddalarni suiiste'mol qilishning xulq-atvor ta'siriga sezgirlikning oshishiga va, ehtimol, giyohvand moddalarni qidirish xatti-harakatlarining kuchayishiga olib kelishi haqida to'g'ridan-to'g'ri dalillarni taqdim etadi. Ushbu ish ΔFosB giyohvandlikning asosini tashkil etuvchi uzoq muddatli neyron va xulq-atvor plastikligiga hissa qo'shadigan o'tkir dori reaktsiyalarini asta-sekin nisbatan barqaror moslashuvlarga aylantiradigan barqaror "molekulyar o'tish" turi sifatida ishlaydi degan fikrni qo'llab-quvvatlaydi.
Qo'shadi tadqiqotlari, suiiste'mol dori vositalarining miyani giyohvandlik xususiyatini belgilovchi xatti-harakatlarga olib kelishini o'zgartiradigan murakkab usullarni tushunishga qaratilgan. Bu sohadagi eng muhim muammolaridan biri, miyada uzoq vaqt davomida yashovchi, odatdagidek dori bilan bog'liq bo'lgan o'zgarishlarni aniqlashga qaratilgan. Misol uchun, insonni giyohvandlik bilan uzoq yillar davom etishi mumkin bo'lsa ham, qayta tiklanish xavfi yuqori bo'lishi mumkin.
Ushbu xulq-atvor anomaliyalarining barqarorligi, ular hech bo'lmaganda qisman gen ekspressiyasidagi o'zgarishlar orqali vositachilik qilinishi mumkin degan fikrga olib keldi (1-3). Ushbu qarashga ko'ra, giyohvand moddaga takroriy ta'sir qilish miyadagi preparatga sezgir bo'lgan ma'lum sinapslarda uzatishni qayta-qayta buzadi. Bunday buzilishlar oxir-oqibat hujayra ichidagi xabarchi kaskadlari orqali yadroga signal beradi, u yerda ular avval ma'lum genlarning ekspressiyasidagi o'zgarishlarni boshlaydi va keyin saqlab turadi. Signal transduktsiya yo'llarining gen ekspressiyasiga ta'sir qilishining asosiy mexanizmi transkripsiya omillarini, ya'ni genlarning tartibga soluvchi mintaqalariga bog'lanadigan va ularning transkripsiyasini o'zgartiradigan oqsillarni tartibga solishdir.
Narkomaniya tadqiqotining bir maqsadi, giyohvand moddalarni noqonuniy qo'llashni surunkali iste'mol qilishdan keyin giyohvandlikda ayblangan miya mintaqalarida o'zgargan transkriptsiya faktorlarini aniqlash edi. O'tgan o'n yilda (1-6) bunday transkriptsiyaning bir necha omillari aniqlangan. Ushbu sharhning asosiy maqsadi DFB deb ataladigan alohida transkriptsion faktordan iborat.
Do'doḱḱon giyohvand moddalar bilan ḱo'lga tushadigan DFBning indulatsiyasi
FosB genlari tomonidan kodlangan FFB, F-Fos, FosB, Fra1 va Fra2 (7) ni o'z ichiga olgan transkriptsiya omillarining Fos turkumiga kiradi. Bu Fos oilasi oqsillari Jun-oilaviy proteynlar (c-Jun, JunB yoki JunD) bilan heterodimerlashadi va AP-1 (faollashtiruvchi oqim-1) transkripsiyasi omillarini hosil qiladi. Bu AP-1 saytlariga (konsensus ketma-ketligi: TGAC / GTCA) ba'zi genlarning targ'ibotchilari ularning transkripsiyasini tartibga solish uchun.
Ushbu Fos oilaviy oqsillari ko'plab suiiste'mollarni (1-8) ko'p miqdorda dori-darmonlarni o'tgach, tezda va vaqtincha ma'lum miya hududlarida indüklenir. Taniqli hududlar dorilarga nisbatan qiziqish bilan javob berishning muhim vositachisi bo'lgan, xususan, ularni mukofotlash va lokomotivni faollashtiruvchi ta'sirlari (11, 12) bo'lgan yadro gulxanlari va dorsal striatumdir. Ushbu oqsillar preparatning bir necha soat ichida bazal darajalariga qaytadi.
Shakl 1
Giyohvand moddalarni suiiste'mol qilishga javoban ΔFosB ning asta-sekin to'planishini va boshqa Fos oilasi oqsillarining tez va vaqtinchalik induksiyasini ko'rsatadigan sxema. (A) Avtoradiogramma bu turli oqsillarning o'tkir stimulyatsiya (bitta dori ta'siridan 1-2 soat o'tgach) va surunkali stimulyatsiya (takroriy dori ta'siridan 1 kun o'tgach) orqali differentsial induksiyasini ko'rsatadi. (B) Fosga o'xshash oqsillarning bir nechta to'lqinlari [c-Fos (52 dan 58 kDa gacha izoformlar), FosB (46 dan 50 kDa gacha izoformlar), ΔFosB (33 kDa izoform) va Fra1 yoki Fra2 (40 kDa) dan iborat] giyohvand moddalarni suiiste'mol qilishni o'tkir yuborish orqali yadro akumbenslari va dorsal striatal neyronlarda induksiyalanadi. Shuningdek, biokimyoviy jihatdan modifikatsiyalangan ΔFosB izoformlari (35-37 kDa) ham induksiyalanadi; ular ham o'tkir dori ta'siridan keyin induksiyalanadi (past darajada bo'lsa ham), lekin barqarorligi tufayli miyada uzoq vaqt saqlanib qoladi. (C) Dori vositalarini takroriy (masalan, kuniga ikki marta) yuborish bilan har bir o'tkir stimul barqaror ΔFosB izoformlarining past darajasini keltirib chiqaradi, bu har bir o'tkir stimul tomonidan qo'zg'atilgan ΔFosB ni ko'rsatadigan pastki chiziqlar to'plami bilan ko'rsatiladi. Natijada surunkali davolash kursi davomida takroriy stimullar bilan ΔFosB umumiy darajasining asta-sekin o'sishi kuzatiladi, bu grafikdagi ortib boruvchi pog'onali chiziq bilan ko'rsatiladi.
Giyohvand moddalarni suiiste'mol qilishning surunkali usullaridan keyin juda boshqacha reaksiyalar kuzatiladi (1-rasm) . ΔFosB ning biokimyoviy modifikatsiyalangan izoformlari (molekulyar massasi 35-37 kDa) takroriy dori ta'siridan keyin miyaning bir xil mintaqalarida to'planadi, boshqa barcha Fos oilasi a'zolari esa tolerantlikni namoyon qiladi (ya'ni, dastlabki dori ta'siriga nisbatan induksiyaning kamayishi). ΔFosB ning bunday to'planishi kokain, morfin, amfetamin, alkogol, nikotin va fensiklidin e uchun kuzatilgan (11, 14-18). Ushbu induksiya ushbu miya mintaqalarida joylashgan o'rta tikanli neyronlarning dinorfin/modda P-o'z ichiga olgan kichik guruhi uchun selektiv ekanligiga oid ba'zi dalillar mavjud (15, 17), ammo buni aniqlik bilan aniqlash uchun ko'proq ishlar talab etiladi. ΔFosB ning 35 dan 37 kDa gacha bo'lgan izoformlari asosan JunD bilan dimerlanadi va bu miya mintaqalarida faol va uzoq muddatli AP-1 kompleksini hosil qiladi (19, 20). Ushbu ΔFosB izoformlari juda uzoq yarim yemirilish davri (21) tufayli surunkali dori ta'sirida to'planadi va shuning uchun preparatni qabul qilish to'xtatilgandan keyin kamida bir necha hafta davomida neyronlarda saqlanib qoladi. Shunisi qiziqki, ushbu ΔFosB izoformlari darhol paydo bo'ladigan erta genning (fosB) juda barqaror mahsulotlari hisoblanadi. ΔFosB izoformlarining barqarorligi, preparatni qabul qilishni to'xtatishning nisbatan uzoq muddatlariga qaramay, preparat tomonidan qo'zg'atilgan gen ekspressiyasidagi o'zgarishlar saqlanib qolishi mumkin bo'lgan yangi molekulyar mexanizmni ta'minlaydi.
Nukleus akumbensi giyohvand moddalarni iste'mol qilishning samarali samarasi uchun muhim rol o'ynasa ham, oziq-ovqat, ichimlik, jinsiy aloqa va ijtimoiy o'zaro ta'sirlar (12, 13) kabi tabiiy nazorat qiluvchilarga javoblarni tartibga solish orqali odatdagidek ishlaydi. Natijada, bu miya hududining boshqa majburiy harakatlarda (masalan, patologik ovlash, qimor, mashqlar va h.k.) mumkin bo'lgan rolida katta qiziqish bor. Shuning uchun biz DF ning majburiy yugurishning hayvon modeli bilan tartibga solinishini tekshirdik. Haqiqatan ham, DFOSB ning barqaror 35-ning 37-kDa izoformlari kalamushlarda sezgir yurishning harakatlarini ko'rsatadigan yadro gabaritlari ichidan tanlab olinadi.
Barqaror DFB Ismoillarining biokimyoviy identifikatsiyasi
Yuqorida aytilganidek, DFOSB izoformlari suyuqlik yoki kompulsiv usulda surunkali dori berishdan keyin to'planadi, bu 35-37 kDa molekulyar massasini ko'rsatadi. Ular bir dori ta'siridan (33, 1, 14) keyin tezda, lekin vaqtincha indulgentsiya qilingan DFS ning 19-kDa izoformidan farqlanishi mumkin. Hozirgi dalillar, 22-kDa izoformining 33-to 35-kDa mahsulotlariga (37, 19) nisbatan barqaror hosil bo'lish uchun o'zgartirilgan, oqsilning tabiiy shakli ekanligini ko'rsatadi. Shu bilan birga, stabil bo'lmagan 21-kDa izoformini barqaror 33-dan 35-kDa izoformlariga aylantirgan biokimyoviy modifikatsiyaning tabiati noaniq qolmoqda. Fosforlanishning javobgar bo'lishi mumkinligi (37). Misol uchun, DFP-ning indüksiyonu DARPP-11, striatal-boyitilgan oqsil (32, 23) bo'lmagan sichqonlarda zaiflashadi. DARPP-24 protein fosfataz-32 va protein kinoaz A (1, 25) ning katalitik faolligini tartibga keltirganligi sababli, ushbu oqsilning barqaror normal birikishi uchun zarur bo'lgan DFSB izoformlari ushbu turg'un mahsulotlarni ishlab chiqarishda fosforilatsiyaga imkon berishini ko'rsatadi.
Tashviqotli giyohvandlikka DFF ning roli
Giyohvandlikda ΔFosB rolini tushunish asosan transgen sichqonlarni o'rganishdan kelib chiqdi, bunda ΔFosB kattalar hayvonlarining yadrosidagi akumbenslar va boshqa striatal mintaqalarida tanlab induktsiya qilinishi mumkin (27, 28). Muhimi, bu sichqonlar ΔFosB ni dinorfin/modda P-o'z ichiga olgan o'rta tikanli neyronlarda tanlab ortiqcha ifodalaydi, bu yerda dorilar oqsilni qo'zg'atishi mumkin deb hisoblanadi. ΔFosB-ni haddan tashqari ifodalovchi sichqonlarning xulq-atvor fenotipi, ko'p jihatdan surunkali dori ta'siridan keyin hayvonlarga o'xshaydi, 1-jadvalda umumlashtirilgan. Sichqonlar o'tkir va surunkali qabul qilingandan keyin kokainga kuchaygan lokomotor javoblarni ko'rsatadi (28). Ular, shuningdek, joyni konditsionerlash tahlillarida kokain va morfinning foydali ta'siriga yuqori sezgirlikni ko'rsatadilar (11, 28) va ΔFosB ni haddan tashqari ifoda etmaydigan axlatdoshlarga qaraganda pastroq dozada kokainni o'z-o'zidan qabul qiladilar.‡ Aksincha, bu hayvonlar Morris suv labirintida kokainga normal shartli lokomotor sezgirlikni va normal fazoviy o'rganishni ko'rsatadilar (28). Ushbu ma'lumotlar shuni ko'rsatadiki, ΔFosB hayvonning kokainga va ehtimol boshqa giyohvand moddalarga sezgirligini oshiradi va dorilarga nisbatan uzoq muddatli sezgirlik mexanizmini ifodalashi mumkin.
 striatum
| O'tkir va takroriy giyoh qo'llanilishiga javoban ko'tarilgan lokomotor faollashuv. |
| Kokain va morfinlarga joyni aniqlash tajribalarida ortib borayotgan retseptlar. |
| Kam dozada kokainni o'z-o'zini boshqarish. |
| Kokainga progressiv nisbatlardagi tajribalar ortib boradi. |
| Spirtli ichimliklarga anksiyolitik javoblar ko'payadi. |
| Majburiy faoliyat yuritishni kuchaytirish. |
28 va 29- havolalardagi ma'lumotlarga asoslangan . †‡§¶
Dorsalus akumbens-dorsal striatumda DFO vositachiligining yurish-turishida plastiklik
Bundan tashqari, ΔFosB ta'siri giyohvandlikka sezgirlikni tartibga solishdan tashqari, giyohvandlik jarayoni bilan bog'liq murakkabroq xatti-harakatlarga ham ta'sir qilishi mumkinligi haqida dastlabki dalillar mavjud. ΔFosB ifodalovchi sichqonlar progressiv nisbatli o'z-o'zini boshqarish tahlillarida kokainni o'z-o'zini boshqarish uchun ko'proq ishlaydi, bu ΔFosB hayvonlarni kokainning rag'batlantiruvchi motivatsion xususiyatlariga sezgir qilishi va shu bilan giyohvand moddalarni iste'mol qilishni to'xtatgandan keyin qaytalanishga moyillikka olib kelishi mumkinligini ko'rsatadi .‡ ΔFosB ifodalovchi sichqonlar shuningdek, alkogolning anksiyolitik ta'sirini kuchaytiradi, § bu fenotip odamlarda spirtli ichimliklarni iste'mol qilishning ko'payishi bilan bog'liq. Birgalikda, bu dastlabki topilmalar shuni ko'rsatadiki, ΔFosB, giyohvand moddalarni suiiste'mol qilishga sezgirlikni oshirishdan tashqari, giyohvand moddalarni qidirish xatti-harakatlarini rag'batlantiradigan xatti-harakatlarda sifatli o'zgarishlarni keltirib chiqaradi. Shunday qilib, ΔFosB giyohvandlik holatining muhim jihatlarini boshlashga va keyin saqlashga yordam beradigan barqaror "molekulyar kalit" vazifasini bajarishi mumkin. Hozirgi tergov ostidagi muhim savol shundaki, giyohvand moddalar ta'sirida ΔFosB to'planishi uzoq muddatli chekinish davrlaridan keyin, hatto ΔFosB darajasi normallashgandan keyin ham giyohvand moddalarni qidirish xatti-harakatlarini rag'batlantiradimi (quyida qarang).
Nucleus accumbens va dorsal striatum ichida ΔFosB ni tanlab ortiqcha ifodalaydigan kattalar sichqonlari, shuningdek, nazorat guruhidagi do'stlariga nisbatan ko'proq kompulsiv yugurishni namoyon etadi.† Ushbu kuzatishlar, ushbu neyronlar ichida ΔFosB to'planishi odat xotiralari va kompulsiv xatti-harakatlarning shakllanishi va saqlanishida umumiyroq rol o'ynashi, ehtimol, bu neyronlar ishlaydigan neyron zanjirlarining samaradorligini oshirish orqali qiziqarli ehtimolni tug'diradi.
ΔFosB kokainga surunkali ta'sir qilgandan so'ng, miyaning yadrosi akumbens va dorsal striatumdan tashqaridagi ayrim mintaqalarida to'planadi. Bu mintaqalar orasida amigdala va medial prefrontal korteks muhim ahamiyatga ega (15). Hozirgi tadqiqotlarning asosiy maqsadi bu mintaqalarda ΔFosB induksiyasining giyohvandlik fenotipiga qo'shgan hissasini tushunishdir.
FosB nokautli sichqonlar ustida ilgari olib borilgan ishlar shuni ko'rsatdiki, bu hayvonlar kokainning lokomotor ta'siriga nisbatan sezgirlikni rivojlantira olmaydi, bu yuqorida aytib o'tilgan DFB-ni haddan tashqari ta'sir qiladigan sichqonlarning topilmalariga mos keladi (22). Shu bilan birga, fosB mutantlari kokainning o'tkir ta'siriga nisbatan sezgirlikni kuchaytirdi, bu esa boshqa topilmalar bilan mos kelmaydi. Topilmalarni fosB mutantlari bilan izohlash bu hayvonlarda nafaqat DFOSB, balki to'liq uzunlikdagi FosB etishmasligi bilan ham murakkablashadi. Bundan tashqari, mutantlarga miyada va rivojlanishning dastlabki bosqichlarida ikkala oqsil etishmaydi. Darhaqiqat, yaqinda olib borilgan ishlar DFOSB haddan tashqari ta'sir qiluvchi sichqonlarning xulosalarini qo'llab-quvvatlaydi: D-FosB ning dominant salbiy antagonisti sifatida ishlaydigan c-Jun kesilgan mutantining induktsiya qilinadigan haddan tashqari ekspressioni, tanlab yadro akumbenslari va dorsal striatumda kokainning foydali ta'siriga nisbatan sezgirlik kamayadi. .¶ Ushbu topilmalar konstitutsiyaviy mutatsiyalarga ega bo'lgan sichqonlarning natijalarini talqin qilishda ehtiyot bo'lishni ta'kidlaydi va kattalar miyasida plastisitni o'rganishda induktsiya va hujayra turiga xos mutatsiyalarga ega sichqonlarning ahamiyatini ko'rsatadi.
DFOSB uchun maqsadli genlar
ΔFosB transkripsiya omili bo'lgani uchun, ehtimol, oqsil boshqa genlarning ifodalanishidagi o'zgarishlar orqali xulq-atvor plastisitesini keltirib chiqaradi. ΔFosB fosB genining muqobil splaysingi natijasida hosil bo'ladi va to'liq uzunlikdagi FosBda mavjud bo'lgan C-terminal transaktivatsiya domenining bir qismiga ega emas. Natijada, dastlab ΔFosB transkripsiya repressori sifatida ishlaydi deb taklif qilingan edi (29). Biroq, hujayra madaniyatidagi ishlar ΔFosB ishlatilgan aniq AP-1 saytiga qarab AP-1 vositachiligidagi transkripsiyani qo'zg'atishi yoki bostirishi mumkinligini aniq ko'rsatdi (21, 29–31). To'liq uzunlikdagi FosB ma'lum promouter fragmentlariga ΔFosB bilan bir xil ta'sir ko'rsatadi, ammo boshqalarga turli xil ta'sir ko'rsatadi. ΔFosB va FosB ning bu xilma-xil harakatlarining asosiy mexanizmlarini tushunish uchun qo'shimcha ishlar talab etiladi.
Bizning guruhimiz DFosB uchun maqsadli genlarni aniqlash uchun ikkita yondashuvdan foydalangan. Ulardan biri nomzodning gen yondashuvi. Dastlab biz a-amino-3-gidroksi-5-metil-4-izoksazolepropionik kislota (AMPA) glutamat retseptorlarini yadro akumbensida glutamaterjik uzatilishining muhim rolini hisobga olgan holda taxminiy maqsad sifatida ko'rib chiqdik. Bugungi kunga qadar olib borilgan ishlar shuni ko'rsatdiki, ma'lum bir AMPA glutamat retseptorlari bo'linmasi, GluR2, DFosB uchun vijdonli maqsad bo'lishi mumkin (2-rasm). GluR2 ekspressioni, ammo boshqa AMPA retseptorlari subbirliklarining ifodasi emas, DFosB (28) ni haddan tashqari chiqarganda yadro akumbenslarida ko'payadi (lekin dorsal striatum emas) va dominant salbiy mutantning ifodasi kokainning oqsilni chaqirish qobiliyatini susaytiradi. Bundan tashqari, GluR2 genining promouteri tarkibida DFosB (1) ni bog'laydigan AP-28 konsensusli sayt mavjud. GluR2 ning akumbens yadrosida haddan tashqari ekspressioni, virusli vositalar yordamida genlarni uzatishni qo'llagan holda, hayvonning kokainning foydali ta'siriga sezgirligini oshiradi va shu bilan DFB ifodalaydigan sichqonlarda ko'rilgan fenotipning bir qismini taqlid qiladi [28]. GluR2 ning induktsiyasi surunkali kokain yuborilgandan keyin yadro akumbensi neyronlarining AMPA retseptorlari agonistlariga bo'lgan elektrofiziologik sezgirligini pasayishiga olib kelishi mumkin [32], chunki GluR2 o'z ichiga olgan AMPA retseptorlari umumiy o'tkazuvchanlikni pasaytiradi va Ca2 + o'tkazuvchanligini pasaytiradi. Ushbu neyronlarning qo'zg'atuvchi kirishga ta'sirchanligini kamaytirish, keyinchalik giyohvand moddalarga bo'lgan munosabatni kuchaytirishi mumkin. Biroq, dopaminerjik va glutamaterjik signallarning o'ziga xos o'ziga xos xususiyatlarini tartibga solish usullari noma'lum bo'lib qolmoqda; buning uchun hali mavjud bo'lmagan asab davri tushunchasi darajasi talab qilinadi.
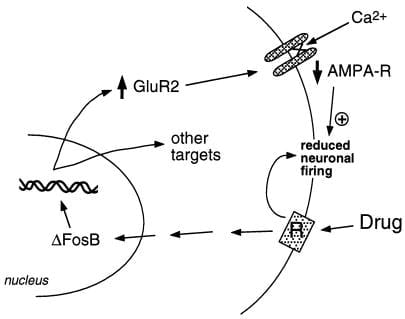
Shakl 2
AMPA glutamat retseptorlari subbirligi, GluR2, ΔFosB uchun taxminiy nishon hisoblanadi. ΔFosB vositachiligida GluR2 induksiyasi yadro akumbens neyronlarining fiziologik javobini qanday o'zgartirishi va suiiste'mol dorilarga sezgir javoblarga olib kelishi mumkinligi ko'rsatilgan. Ushbu sxemaga ko'ra, suiiste'mol dorilar yadro akumbens neyronlarini inhibe qilish orqali o'tkir kuchaytiruvchi ta'sirini keltirib chiqaradi. Takroriy ta'sir qilish bilan dorilar GluR2 ni o'z ichiga olgan ko'plab maqsadli genlarni boshqaradigan ΔFosB ni qo'zg'atadi. Bu GluR2 subbirligini o'z ichiga olgan yadro akumbens neyronlaridagi AMPA retseptorlari (AMPA-R) ulushini oshiradi, bu esa umumiy AMPA oqimining pasayishiga va Ca2+ oqimining pasayishiga olib keladi. Bu qo'zg'aluvchanlikning pasayishi neyronlarni dorilarning o'tkir inhibitiv ta'siriga va shu bilan dorilarning kuchaytiruvchi ta'siriga ko'proq sezgir qilishi mumkin.
ΔFosB uchun yana bir taxminiy nishon - bu dinorfinni kodlovchi gen . Avval aytib o'tilganidek, dinorfin ΔFosB induksiyasini ko'rsatadigan yadro akumbens o'rta tikanli neyronlarning kichik to'plamida ifodalanadi . Dinorfin hujayralararo teskari aloqa halqasida ishlaydiganga o'xshaydi: uning ajralib chiqishi yadro akumbensidagi dopaminergik nerv terminallarida mavjud bo'lgan κ opioid retseptorlari va shuningdek, ventral tegmental sohadagi hujayra tanalari va dendritlari orqali o'rta tikanli neyronlarni innervatsiya qiladigan dopaminergik neyronlarni inhibe qiladi (3-rasm) (33-35). Bu g'oya κ retseptor agonistining ushbu ikki miya mintaqasining biriga kiritilganda dori mukofotini kamaytirish qobiliyatiga mos keladi (35).
So'nggi tadqiqotlar shuni ko'rsatdiki, ΔFosB dinorfin ekspressiyasini kamaytiradi, bu esa ΔFosB induksiyasi bilan kuzatiladigan mukofot mexanizmlarining kuchayishiga hissa qo'shishi mumkin. Qizig'i shundaki, yana bir dori vositasi bilan boshqariladigan transkripsiya omili, CREB (cAMP javob elementini bog'lovchi oqsil) (2, 3), teskari ta'sir ko'rsatadi: u yadro akumbensida dinorfin ekspressiyasini keltirib chiqaradi va kokain va morfinning mukofotlovchi xususiyatlarini kamaytiradi (4).**
CREB ning dori vositasida faollashishi preparatni qo'llashdan keyin tezda tarqalib ketganligi sababli , CREB va ΔFosB tomonidan dinorfinning bunday o'zaro regulyatsiyasi, chekinishning dastlabki va kech bosqichlarida yuzaga keladigan o'zaro xulq-atvor o'zgarishlarini tushuntirishi mumkin, bunda chekinishning dastlabki bosqichlarida salbiy hissiy alomatlar va dori sezgirligining pasayishi ustunlik qiladi va keyingi vaqt nuqtalarida dorilarning mukofotlovchi va rag'batlantiruvchi motivatsion ta'siriga sezgirlik ustunlik qiladi.
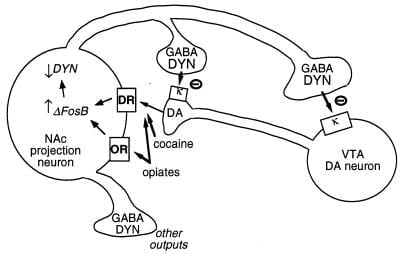
Shakl 3
Dynorphin ΔFosB uchun taxminiy nishon hisoblanadi. Ko'rsatilgan ventral tegmental soha (VTA) dopamin (DA) neyroni yadro akumbenslari (NAc) sinfini innervatsiya qiladi, bu dynorphin (DYN) ni ifodalaydi. Dynorphin bu zanjirda teskari aloqa mexanizmiga xizmat qiladi: NAc neyronlarining terminallaridan ajralib chiqadigan dinorphin, DA neyronlarining asab terminallari va hujayra tanalarida joylashgan κ opioid retseptorlariga ta'sir qilib, ularning ishlashini inhibe qiladi. ΔFosB , dinorphin ekspressiyasini inhibe qilish orqali, bu teskari aloqa halqasini pasaytirishi va giyohvand moddalarni suiiste'mol qilishning foydali xususiyatlarini oshirishi mumkin. CREB ning ushbu tizimga o'zaro ta'siri ko'rsatilmagan: CREB dinorphin ekspressiyasini kuchaytiradi va shu bilan giyohvand moddalarni suiiste'mol qilishning foydali xususiyatlarini susaytiradi (4). GABA, γ-aminobutirik kislota; DR, dopamin retseptorlari; OR, opioid retseptorlari.
DFosB uchun maqsadli genlarni aniqlash uchun ishlatiladigan ikkinchi yondashuv DNK mikroarray tahlilini o'z ichiga oladi. DFosB ning induktsiya qilinmaydigan haddan tashqari ekspressioni ko'p sonli genlarning ekspluatatsiyasini oshiradi yoki kamaytiradi [36]. Hozirgi vaqtda ushbu genlarning har birini DFOSB ning fiziologik maqsadlari sifatida tasdiqlash va ularning fenotipga bog'liqligini his qilishini tushunish uchun juda ko'p ish kerak bo'lsa-da, muhim maqsadlardan biri Cdk5 (siklinga bog'liq kinaz-5). Shunday qilib, Cdk5 dastlab DFOSB tomonidan tartibga solinganligi aniqlandi, u mikroarraylardan foydalangan va keyinchalik surunkali kokain administratsiyasidan keyin yadro akumbenslari va dorsal striatumda induktsiyalangan [37]. DFOSB genning promouteri (5) tarkibida mavjud bo'lgan AP-1 sayti orqali cdk36 genini faollashtiradi. Birgalikda, ushbu ma'lumotlar kokain DFosB orqali ushbu miya mintaqalarida Cdk5 ekspresiyasini keltirib chiqaradigan sxemani qo'llab-quvvatlaydi. Cdk5 induksiyasi DARPP-32 (37) ning ko'paygan fosforillanishi orqali dopaminerjik signalizatsiyani qisman o'zgartiradi, bu esa protein fosfataza-1 inhibitoridan Cdk5 (26) tomonidan fosforillanishi natijasida protein A kinaz inhibitoriga aylanadi.
"Fosb" ning "doimiy" plastisitani noqonuniy giyohvandlarga vositachilik qilishdagi o'rni
ΔFosB signali nisbatan uzoq umr ko'rsa-da, u doimiy emas. ΔFosB asta-sekin pasayadi va giyohvand moddalarni iste'mol qilishni to'xtatgandan keyin 1-2 oydan keyin miyada aniqlanmaydi, garchi ba'zi xulq-atvor anomaliyalari ancha uzoq vaqt davom etsa ham. Shuning uchun, ΔFosB o'zi bu yarim doimiy xulq-atvor anomaliyalarini vositachilik qila olmaydiganga o'xshaydi. Giyohvandlik bilan bog'liq juda barqaror xulq-atvor o'zgarishlarining asosida yotgan molekulyar moslashuvlarni topishdagi qiyinchilik o'rganish va xotira sohasida duch keladigan qiyinchiliklarga o'xshaydi. O'rganish va xotiraning oqlangan hujayrali va molekulyar modellari mavjud bo'lsa-da, hozirgi kunga qadar yuqori darajada barqaror xulq-atvor xotiralarini hisobga olish uchun etarlicha uzoq umr ko'radigan molekulyar va hujayrali moslashuvlarni aniqlashning iloji bo'lmadi. Darhaqiqat, ΔFosB kattalar miyasida nafaqat giyohvand moddalarni suiiste'mol qilishga, balki boshqa har qanday buzilishlarga (lezyonlarni o'z ichiga olmaydigan) ham javoban yuzaga keladigan eng uzoq umr ko'radigan moslashuvdir. Ushbu nomuvofiqlikni hisobga olish uchun giyohvandlik va o'rganish va xotira sohalarida ikkita taklif paydo bo'ldi.
Bir ehtimol shundaki, gen ekspressiyasidagi ko'proq vaqtinchalik o'zgarishlar, masalan, ΔFosB yoki boshqa transkripsiya omillari (masalan, CREB) orqali sodir bo'ladigan o'zgarishlar, neyronal morfologiya va sinaptik tuzilishdagi uzoq muddatli o'zgarishlarga vositachilik qilishi mumkin. Masalan, dendritik umurtqa pog'onalari zichligining oshishi (ayniqsa, ikki boshli umurtqa pog'onalari ko'payishi) uzoq muddatli potentsiatsiya paytida hipokampal piramidal neyronlarda glutamaterjik sinapslarning samaradorligining oshishi bilan birga keladi (38-40) va yadro akumbensining o'rta tikanli neyronlari darajasida vositachilik qilingan kokainga nisbatan xulq-atvor sezgirligining kuchayishi bilan parallel ravishda sodir bo'ladi (41). Bunday strukturaviy o'zgarishlar xatti-harakatlardagi yuqori barqaror o'zgarishlarni hisobga olish uchun yetarlicha uzoq muddatli ekanligi noma'lum, garchi ikkinchisi giyohvand moddalarni iste'mol qilishni to'xtatgandan keyin kamida 1 oy davom etsa ham. So'nggi dalillar ΔFosB va uning Cdk5 ni induksiyasi yadro akumbensidagi sinaptik tuzilishdagi dori vositalaridan kelib chiqadigan o'zgarishlarning vositachilaridan biri ekanligi ehtimolini oshiradi (4-rasm).‡‡ Shunday qilib, Cdk5 inhibitorini yadro akumbensiga kiritish kokain ta'sirining bu sohada dendritik umurtqa zichligini oshirish qobiliyatini oldini oladi. Bu miyada boy bo'lgan Cdk5 nerv tuzilishi va o'sishini tartibga soladi degan fikrga mos keladi (36 va 37-havolalarga qarang). Neyron morfologiyasidagi bunday o'zgarishlar ΔFosB signalining o'zidan uzoqroq davom etishi mumkin, garchi hech qanday tarzda isbotlanmagan bo'lsa ham.
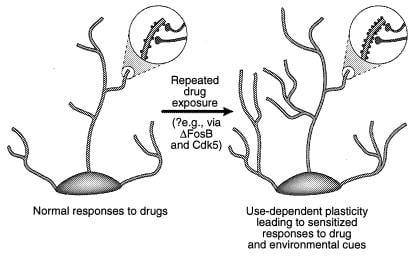
Shakl 4
Dendritik tuzilishni suiiste'mol qilish bilan tartibga solish. Uzoq muddatli giyohvand moddalarga ta'sir qilishdan so'ng neyronning dendritik daraxtining kengayishi ko'rsatilgan, chunki yadro akumbensida va prefrontal korteksda kokain bilan kuzatilgan [41]. Kattalashtirish joylari dendritik o'murtqa o'sishni ko'rsatadi, bu faollashtirilgan nerv terminallari bilan birgalikda paydo bo'lishi uchun postulyatsiya qilinadi. Dendritik o'murtqa zichlikdagi bu o'sish DFosB va natijada Cdk5 induksiyasi orqali amalga oshirilishi mumkin (matnga qarang). Dendritik tuzilishdagi ba'zi bir o'zgartirishlar, ba'zi o'quv modellarida kuzatilganlarga o'xshash (masalan, uzoq muddatli kuchaytirish), giyohvand moddalar yoki atrof-muhitga oid ko'rsatmalarga nisbatan uzoq muddatli sezgir ta'sirga vositachilik qilishi mumkin. [Ref-ning ruxsati bilan qayta tiklandi. 3 (Mualliflik huquqi 2001 yil, Macmillian Magazines Ltd.)].
Yana bir imkoniyat shundaki, transkripsiya omilining (masalan, ΔFosB, CREB) vaqtinchalik induksiyasi xromatin n modifikatsiyasi orqali gen ekspressiyasida doimiyroq o'zgarishlarga olib keladi . Bu va boshqa ko'plab transkripsiya omillari gen yaqinida gistonlarning mos ravishda atsetilatsiyasi yoki deatsetilatsiyasini rag'batlantirish orqali maqsadli gen transkripsiyasini faollashtiradi yoki bostiradi deb ishoniladi (42). Gistonlarning bunday atsetilatsiyasi va deatsetilatsiyasi juda tez sodir bo'lishi mumkin bo'lsa-da, ΔFosB yoki CREB giston atsetilatsiyasini boshqaradigan fermentativ mexanizmda uzoqroq muddatli moslashuvlarni keltirib chiqarishi mumkin. ΔFosB yoki CREB shuningdek, rivojlanish jarayonida yuzaga keladigan gen transkripsiyasidagi doimiy o'zgarishlarga aloqador bo'lgan xromatinning boshqa modifikatsiyalarini (masalan, DNK yoki giston metilatsiyasi) tartibga solish orqali gen ekspressiyasida uzoqroq muddatli o'zgarishlarni rag'batlantirishi mumkin (42 va 43-havolalarga qarang). Bu imkoniyatlar spekulyativ bo'lib qolsa-da, ular giyohvand moddalarni suiiste'mol qilishga (yoki boshqa biron bir buzilishga) vaqtinchalik moslashuvlar asosan umrbod xulq-atvor oqibatlariga olib keladigan mexanizmni taqdim etishi mumkin.
Manbalar
- ↵
- Nestler EJ,
- Hope IT,
- Widnell KL
(1993) Neuron 11: 995-1006.
CrossRef Medline Web of Science
- ↵
- Barkiy JD,
- Hyman SE
(2000) Neuron 25: 515-532.
CrossRef Medline Web of Science
- ↵
- Nestler EJ
(2001) Nat Rev Neurosci 2: 119-128.
CrossRef Medline Web of Science
- ↵
- Carlezon Vt Jr,
- Thome J,
- Olson VG,
- Lane-Ladd SB,
- Brodkin ES,
- Hiroi N,
- Duman RS,
- Neve RL,
- Nestler EJ
(1998) Fan 282: 2272-2275.
-
- O'Donovan KJ,
- Tourtellotte WG,
- Millbrandt J,
- Baraban JM
(1999) Trends Neurosci 22: 167-173.
CrossRef Medline Web of Science
- ↵
- Mackler SA,
- Korutla L,
- Cha XY,
- Koebbe MJ,
- Fourier KM,
- Budda mil.
- Kalivas PW
(2000) J Neurosci 20: 6210-6217.
- ↵
- Morgan JI,
- Curran T
(1995) Trends Neurosci 18: 66-67.
CrossRef Medline Web of Science
- ↵
- Yosh ST,
- Porrino LJ,
- Iadarola MJ
(1991) Proc Natl Acad Sci AQSh 88: 1291-1295.
-
- Graybiel AM,
- Moratalla R,
- Robertson HA
(1990) Proc Natl Acad Sci AQSh 87: 6912-6916.
-
- Umid B,
- Kosofskiy B,
- Hyman SE,
- Nestler EJ
(1992) Proc Natl Acad Sci AQSh 89: 5764-5768.
- ↵
- Kelz MB,
- Nestler EJ
(2000) Curr Opin Neurol 13: 715-720.
CrossRef Medline Web of Science
- ↵
- Koob GF,
- Sanna PP,
- Bloom FE
(1998) Neuron 21: 467-476.
CrossRef Medline Web of Science
- ↵
- Hikmatli RA
(1998) Ichkilikka nisbatan giyohvandlik 51: 13-22.
CrossRef Medline Web of Science
- ↵
- Hope IT,
- Nye U,
- Kelz MB,
- O'z DW,
- Iadarola MJ,
- Nakabeppu Y,
- Duman RS,
- Nestler EJ
(1994) Neuron 13: 1235-1244.
CrossRef Medline Web of Science
- ↵
- Nye X,
- Hope IT,
- Kelz M,
- Iadarola M,
- Nestler EJ
(1995) J Pharmacol Exp Ther 275: 1671-1680.
-
- Nye U,
- Nestler EJ
(1996) Mol Pharmacol 49: 636-645.
- ↵
- Moratalla R,
- Elibol B,
- Vallejo M,
- Graybiel AM
(1996) Neuron 17: 147-156.
CrossRef Medline Web of Science
- ↵
- Pich EM,
- Pagliusi SR,
- Tessari M,
- Talabot-Ayer D,
- Hooft van Huijsduijnen R,
- Chiamulera C
(1997) Fan 275: 83-86.
- ↵
- Chen JS,
- Nye U,
- Kelz MB,
- Hiroi N,
- Nakabeppu Y,
- Hope IT,
- Nestler EJ
(1995) Mol Pharmacol 48: 880-889.
- ↵
- Hiroi N,
- Jigarrang J,
- Ha, H,
- Saudou F,
- Vaidya VA,
- Duman RS,
- Greenberg ME,
- Nestler EJ
(1998) J Neurosci 18: 6952-6962.
- ↵
- Chen J,
- Kelz MB,
- Hope IT,
- Nakabeppu Y,
- Nestler EJ
(1997) J Neurosci 17: 4933-4941.
- ↵
- Hiroi N,
- Jigarrang J,
- Haile S,
- Ha, H,
- Greenberg ME,
- Nestler EJ
(1997) Proc Natl Acad Sci AQSh 94: 10397-10402.
- ↵
- Fienberg AA,
- Hiroi N,
- Mermelstein R,
- Song WJ,
- Snyder GL,
- Nishi A,
- Cheramy A,
- O'Callaghan JP,
- Miller D,
- Cole DG,
- va boshq.
(1998) Fan 281: 838-842.
- ↵
- Hiroi N,
- Feinberg A,
- Haile S,
- Greengard R,
- Nestler EJ
(1999) Eur J Neurosci 11: 1114-1118.
CrossRef Medline Web of Science
- ↵
- Greengard R,
- Allen PB,
- Nairn AC
(1999) Neuron 23: 435-447.
CrossRef Medline Web of Science
- ↵
- Bibb JA,
- Snyder GL,
- Nishi A,
- Yan Z,
- Meijer L,
- Fienberg AA,
- Tsai LH,
- Kwon YT,
- Girault JA,
- Czernik AJ,
- va boshq.
(1999) Tabiat (London) 402: 669-671.
- ↵
- Chen JS,
- Kelz MB,
- Zeng GQ,
- Sakai N,
- Steffen S,
- Shockett pe,
- Picciotto M,
- Duman RS,
- Nestler EJ
(1998) Mol Pharmacol 54: 495-503.
- ↵
- Kelz MB,
- Chen JS,
- Carlezon, VV,
- Whisler K,
- Gilden L,
- Beckmann AM,
- Steffen S,
- Zhang YJ,
- Marotti L,
- Self SW,
- va boshq.
(1999) Tabiat (London) 401: 272-276.
- ↵
- Dobrazanski R,
- Noguchi T,
- Kovary K,
- Rizzo CA,
- Lazo PS,
- Bravo R.
(1991) Mol hujayrali Biol 11: 5470-5478.
-
- Nakabeppu Y,
- Nathans D
(1991) Hujayra 64: 751-759.
CrossRef Medline Web of Science
- ↵
- Yangi J,
- Donolik RM,
- Tratner I,
- Verma IM
(1991) Proc Natl Acad Sci AQSh 88: 5077-5081.
- ↵
- Oq FJ,
- Hu XT,
- Zhang XF,
- Wolf ME
(1995) J Pharmacol Exp Ther 273: 445-454.
- ↵
- Hyman SE
(1996) Neuron 16: 901-904.
CrossRef Medline Web of Science
-
- Kreek MJ
(1997) Pharmacol Biochem Behav 57: 551-569.
CrossRef Medline Web of Science
- ↵
- Shippenberg TS,
- Rea V
(1997) Pharmacol Biochem Behav 57: 449-455.
CrossRef Medline Web of Science
- ↵
- Chen JS,
- Zhang YJ,
- Kelz MB,
- Steffen S,
- Ang RaI,
- Zeng L,
- Nestler EJ
(2000) J Neurosci 20: 8965-8971.
- ↵
- Bibb JA,
- Chen JS,
- Teylor JR,
- Svenningsson R,
- Nishi A,
- Snyder GL,
- Yan Z,
- Sagawa ZK,
- Nairn AC,
- Nestler EJ,
- va boshq.
(2001) Tabiat (London) 410: 376-380.
- ↵
- Luscher C,
- Nicoll RA,
- Malenka RC,
- Muller D
(2000) Nat Neurosci 3: 545-550.
CrossRef Medline Web of Science
-
- Malinow R,
- Zeynep Zeynep,
- Hayashi Y.
(2000) Curr Opin Neurobiol 10: 352-357.
CrossRef Medline Web of Science
- ↵
- Skannevin RH,
- Huganir RL
(2000) Nat Rev Neurosci 1: 133-141.
CrossRef Medline Web of Science
Robinson, TE & Kolb, B. (1999) (1997) Evr. J. Neurosci. 11, 1598–1604.
- ↵
- Carey M,
- Smale ST
(2000) Eukaryotlarda transkripsiyadan regulyatsiya (Cold Spring Harbor Lab. Press, Plainview, NY).
- ↵
- Spencer VA,
- Davie JR
(1999) Yana 240: 1-12.
CrossRef Medline Web of Science
 Facebook
 Twitter
- Google+
 CiteULike
 mazali
 Digg
 Mendeley
HighWire Ushbu maqolga asoslanib maqolalar chop etildi
- Tabiiy va Giyohvand moddalarni Nafas olish uchun Mexanizmlar Qonuni {Delta} FosB bilan Key Mediator J. Neurosci. 2013 33 (8) 3434-3442
- Giyohvandlik, jinoyatchilik va Hedon allostazlarining epigenetiği Zamonaviy jazo adliya jurnali 2012 28 (3) 314-328
- mavhum
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- mavhum
- To'liq matn (HTML)
- To'liq matn (PDF)
- Morphine D-ro'zg'or Ganglioni Neyronlardan olingan F1 hujayralarida 1 / 2 orqali ekstrasellular signali-regulyatsiya qilingan kinazlar orqali 27 ta oltitali transkriptsion faktor-11 / J. Pharmacol. Exp. Ther. 2012 342 (1) 41-52
- Gateway dori uchun molekulyar mexanizm: kokaindan Nikotin Prime Gen Expression tomonidan boshlangan epigenetik o'zgarishlar Sci Transl Med 2011 3 (107) 107ra109
- Kengaytirilgan sakkroz va kokainning o'z-o'zini boshqarish va sichqonlardagi VGLUT2 ning yo'qolib ketganidan keyin chaqiradigan dori vositasini sichqoncha ichidagi dopamin neyronlari bilan izlash J. Neurosci. 2011 31 (35) 12593-12603
- Surunkali intervalgacha hipoksi, markaziy otonomik mintaqalarda qon bosimini va FosB / {Delta} FosB ekspresyonunu ziyoda. Bilaman. J. Physiol. Regul. Integr. Komp. Physiol. 2011 301 (1) R131-R139
- GPR37 / PAEL retseptorlari yo'qligi striatal Akt va ERK2 fosforillanishini, {Delta} FosB ifodasini va amfetamin va kokainga shartli joy tanlashni keltirib chiqaradi FASEB J. 2011 25 (6) 2071-2081
- Boshlang'ich spirtli ichimliklarga ta'sir qilish davomiyligi va molekulyar bardoshlikning davomiyligi o'rtasidagi munosabatlar Markazda nojo'ya J. Neurosci. 2011 31 (7) 2436-2446
- Vivo jonzotlarida Bioluminescence imaging redovaskulyar gipertenziya bilan sichqonlarning paraventrikulyar yadrosida Redox-regulatsiyalangan aktivatori Protein-1 faollashishini ochib beradi. 2011 57 (2) gipertenziya 289-297
- Delta Fosbning Striatal Ekspertizasi Surunkali Levodopaning Tuxmati Harakatsiz harakatlari J. Neurosci. 2010 30 (21) 7335-7343
- Asosiy psixotik bezovtaliklarda ekologik ta'sirlarning epigenetik mediatsiyasi Shizofr Bull 2009 35 (6) 1045-1056
- Amfetaminga surunkali ta'sir qilishni aniqlash uchun DNKga asoslangan MRI problari J. Neurosci. 2009 29 (34) 10663-10670
- Kokaindan chiqarilgan kalamushlarda dendritik o'mtoqning plyptilik o'zgarishi J. Neurosci. 2009 29 (9) 2876-2884
- Drosophila'dagi haddan tashqari ekspluatatsiya ekrani GSK-3 ning beta-1 ning neyronal rollarini aniqlaydi / AP-XNUMX-Dependent rivojlanish plastisitesining regulyatori Genetika 2008 180 (4) 2057-2071
- Transkriptsiya MRI: hayot miyasining yangi ko'rinishi Neuroscientist 2008 14 (5) 503-520
- Orbitofrontal korteks mediasiyasida FosB induktsiya Kokainga sabab bo'lgan kognitif funktsiyaga bardoshlik. J. Neurosci. 2007 27 (39) 10497-10507
- Glial hujayra chizig'idan olingan neyrotrofik faktor mutant sichqonlarida metamfetamin izlash qobiliyatini tiklash uchun mustahkam zaiflik FASEB J. 2007 21 (9) 1994-2004
- Nucleus Accumbens-da FosB oziq-ovqat bilan mustahkamlangan instrumental xatti-harakatlarni tartibga soladi. J. Neurosci. 2006 26 (36) 9196-9204
- Fosforlanish orqali {Delta} FosB barqarorligini tartibga solish. J. Neurosci. 2006 26 (19) 5131-5142
- Dopaminda D1 retseptorlari tarkibidagi hujayralardagi mutant NMDA retseptorlari ifodasi Kokain sezuvchanligini oldini oladi va kokainning afzalligini kamaytiradi J. Neurosci. 2005 25 (28) 6651-6657
- D1 Dopamin Retseptorlari intervalgacha morfin ma'muriyatidan so'ng (Delta) FosB inductionini Rat Striatumda modulyatsiya qiladi. J. Pharmacol. Exp. Ther. 2005 314 (1) 148-154
- Oliy ixtiyoriy g'ildirak harakat qilish uchun tanlangan sichqon neyrobiologiyasi Integr. Komp. Biol. 2005 45 (3) 438-455
- Sichqoncha supraoptik yadro va laminali terminali mintaqada suv yo'qotish va S-Fos va FosB bo'yog'ida regidratsiyaning ta'siri Bilaman. J. Physiol. Regul. Integr. Komp. Physiol. 2005 288 (1) R311-R321
- Osteoblastlarda mexanik stress orqali FosB / {Delta} FosB geni transkripsiyadan indüksiyonu J Biol Chem 2004 279 (48) 49795-49803
- Kronik zo'riqishdan keyin mukofotga bog'liq miya tuzilmalaridagi {Delta} FosB indüksiyasini J. Neurosci. 2004 24 (47) 10594-10602
- Sim1 gen dozasi sichqonlardagi yuqori yog'li yog'larga homostatik ovqatlantirish javobini modulyatsiya qiladi Bilaman. J. Physiol. Endokrinol. Metab. 2004 287 (1) E105-E113
- Gidrostatik bosimga javoban insonning optik asab bosh astrositlarida gen ekspressionini DNK mikroarrayasi tahlil qilish Physiol. 2004 17 (2) 157-169 genomikasi
- Superoksid Markaziy nerv tizimi tomonidan miyokard infarkti bilan bog'liq yurak etishmovchiligini faollashtirish va simpatik tahlilga jalb qiladi. Circ. Res. 2004 94 (3) 402-409
- Adrenozin A2A retseptorlari takroriy dopaminerjik stimulyatsiyaga neyroadaptatsiyada: Parkinson kasalligida diskineziyalarni davolashga ta'siri 2003 61 (90116) sinxron kasalligi S74-81
- Fibroblastlar bilan bog'liq bo'lgan sitoplazmik nervlarni lomboz qilish, Rana eskulenta, Tvissin: In Vivo va bevosita in vitro ta'sirida Gonadotropin-erkinlashuvchi gormon agonistining ta'siri Biol. Reprod. 2003 68 (3) 954-960
- Periadolzensiya sichqonlari kokain va amfetaminlarga javoban takomillashtirilgan Delta FosB ning yangilanishi J. Neurosci. 2002 22 (21) 9155-9159
- Delta FosB g'ildirakni boshqaradi J. Neurosci. 2002 22 (18) 8133-8138
- Nucleus accumbens qobig'idagi CREB faoliyati emotsional stimullarga nisbatan qiziqishlariga javoblarni nazorat qiladi Proc. Natl. Akad. Sci. AQSh 2002 99 (17) 11435-11440
- Psixogenomik: O'zaro tushunish uchun imkoniyatlar J. Neurosci. 2001 21 (21) 8324-8327