Բիոլոգիական հոգեբուժություն: 2008 Դեկ 1; 64 (11): 941-50: Epub 2008 Jul 26:
Teegarden SL, Nestler EJ, Bale TL- ն:
Աղբյուր
Կենդանի բիոլոգիայի ամբիոն, Փենսիլվանիայի համալսարան, Ֆիլադելֆիա, PA 19104-6046, ԱՄՆ:
Վերացական
ՄԻՋԱՎԱՅՐԸ:
Պարգեւատրման զգայունությունը ենթարկվել է որպես թմրանյութերի չարաշահման հետ կապված վարքագծի, ինչպես նաեւ overeating- ի կանխատեսելի գործոն: Այնուամենայնիվ, անհիմն պարգեւատրման հիմքում ընկած մեխանիզմները անհայտ են: Մենք ենթադրում էինք, որ դոպամինային ազդանշանների դիսեգրումը կարող է լինել բարձրացված պարգեւատրման զգայունության հիմքում ընկած պատճառ, որի շնորհիվ խթանող խթանները կարող են գործել համակարգը կարգավորելու համար:
ՄԵԹՈԴՆԵՐ:
Մենք օգտագործում էինք գենետիկական մկնիկի մոդելը, որը բարձրացնում է պարգեւատրման զգայունության բարձր մակարդակը, Delta FosB- գերազանցող ճնշող մկնիկը, ուսումնասիրելու վարձատրության բարձր տհաճ սննդակարգի պատասխանը: Այս մկների մեջ վարձատրության ազդանշանների մարկերները հետազոտվել են հիմնականում եւ 6 շաբաթվա ընթացքում ընդունելի դիետայի ազդեցության տակ: Մկները փորձարկվել են վարքային փորձարկումից հետո, բարձր ճարպային դիետայի հանելուց հետո, այս մոդելի խոցելիությունը գնահատելու համար պարգեւատրվող խթանների հեռացումը:
ԱՐԴՅՈՒՆՔՆԵՐ
Մեր արդյունքները ցույց են տալիս պարգևատրման ուղու ակտիվացման փոփոխություն կորիզ accumbens-hypothalamic-ventral tegmental տարածքի շղթաների երկայնքով, որը առաջանում է Delta FosB-ի գերարտահայտման հետևանքով կորիզ accumbens և striatal շրջաններում : Ֆոսֆորիլացված ցիկլիկ ադենոզին մոնոֆոսֆատի (cAMP) պատասխան տարր կապող սպիտակուցի (pCREB), ուղեղից ստացված նեյրոտրոֆիկ գործոնի (BDNF) և դոֆամինի ու ցիկլիկ ադենոզին մոնոֆոսֆատի կարգավորվող ֆոսֆոպրոտեինի՝ 32 կԴա մոլեկուլային զանգվածով (DARPP-32) մակարդակները կորիզ accumbens-ում նվազել են Delta FosB մկների մոտ, ինչը վկայում է դոֆամինի ազդանշանային ուղու նվազման մասին: Վեց շաբաթ բարձր ճարպային սննդակարգի ազդեցությունը լիովին մեղմացրել է այս տարբերությունները՝ բացահայտելով համեղ սննդակարգի հզոր պարգևատրող կարողությունը: Delta FosB մկները նաև ցույց են տվել շարժողական ակտիվության և անհանգստության հետ կապված արձագանքների զգալի աճ բարձր ճարպային դուրսբերումից 24 ժամ անց:
ԵԶՐԱԿԱՑՈՒԹՅՈՒՆՆԵՐ:
Այս արդյունքները հաստատում են Դելտա ՖոսԲ-ի և դոպամինային ազդանշանների դիսռեգուլյացիայի հետ կապված պարգևատրման փոփոխությունների նկատմամբ զգայունություն, որը կարող է կարգավորվել համեղ դիետաներով և կարող է լինել նախատրամադրող ֆենոտիպ գիրության որոշ ձևերում :
ներածություն
Չնայած ախորժակը և հագեցվածությունը կարգավորող նյարդային համակարգերի մասին մեր գիտելիքների աճին, Միացյալ Նահանգներում ճարպակալման մակարդակը շարունակում է աճել: Ներկայիս դեղորայքային բուժումները սահմանափակ արդյունավետություն ունեն, իսկ վարքային փոփոխությունները տառապում են երկարաժամկետ նվազագույն համապատասխանությունից (1): Կալորիականությամբ խիտ, համեղ սննդի սպառումը կապված է եղել ուղեղի սթրեսի և պարգևատրման ուղիների փոփոխությունների հետ, ինչը ենթադրում է, որ նման սննդի պարգևատրող հատկությունները կարող են գերակշռել էներգետիկ հաշվեկշռի ազդանշանները (2-4): Ճարպով հարուստ սնունդը գործում է որպես բնական պարգևատրում՝ ակտիվացնելով ուղեղի պարգևատրման կենտրոնները՝ նմանվելով չարաշահման թմրանյութերին, և որպես այդպիսին օգտագործվել է ինքնակառավարման մոդելներում (5-8): Այսպիսով, հավանական է, որ չափից շատ ուտելու և թմրանյութերի չարաշահման վարքագիծը և մոտիվացիան ունեն ընդհանուր հիմքում ընկած մեխանիզմներ, ինչը հնարավոր է բացում երկու հիվանդությունների բուժման նոր ուղիներ:
Համեղ սննդի և ուղեղում պարգևատրման ու սթրեսի կարգավորման ուղիների միջև եղած կապը ուսումնասիրելիս մենք նախկինում բացահայտել ենք մոլեկուլային և կենսաքիմիական մարկերներ, որոնք վկայում են պարգևատրման նվազման և սթրեսի աճի մասին՝ համեղ բարձր ճարպային դիետայից (HF) դուրս գալուց հետո: Նման չարաշահման թմրանյութերին, մեր ուսումնասիրություններում համեղ սննդակարգի ազդեցությունը հանգեցրել է ΔFosB տրանսկրիպցիոն գործոնի մակարդակի բարձրացմանը կորիզ accumbens-ում (NAc), որը կենտրոնական ուղեղի պարգևատրման կառուցվածք է (9, 10) : Մկները, որոնք ինդուկտիվորեն գերարտահայտում են ΔFosB, ցույց են տալիս սննդային պարգևատրման նկատմամբ գործիքային արձագանքի աճ (11), ինչը նրանց դարձնում է արժեքավոր գործիք՝ համեղ սննդակարգի նկատմամբ մոլեկուլային և կենսաքիմիական արձագանքներում պարգևատրման համակարգի զգայունության և երկարաժամկետ դիսռեգուլյացիայի դերը ուսումնասիրելու համար:
Այս ուսումնասիրության մեջ մենք օգտագործել ենք ΔFosB գերարտահայտող մկները՝ ուսումնասիրելու համար NAc-հիպոթալամուս-վենտրալ տեգմենտալ տարածքի (VTA) նեյրոշարժակազմում պարգևատրման մարկերների երկարատև փոփոխությունները, որոնք տեղի են ունենում համեղ HF դիետայի նկատմամբ: Հիմնվելով այս պարգևատրման նկատմամբ զգայուն մկների վրա կատարված նախորդ ուսումնասիրությունների վրա, մենք ենթադրեցինք, որ ΔFosB-ի կողմից առաջացած պարգևատրման զգայունության փոփոխությունները ենթադրում են դոպամինի ազդանշանային դիսռեգուլյացիա, որը առաջանում է VTA-ին NAc հետադարձ կապի արդյունքում: Ավելին, մենք ենթադրեցինք, որ էներգետիկ խիտ HF դիետայի բնական պարգևատրմանը ենթարկվելը կկարգավորի դոպամիներգիկ համակարգը այս մկների մոտ, ինչը կհանգեցնի այս HF դիետայից դուրս գալու սթրեսի նկատմամբ չափազանցված արձագանքի : Համեղ դիետան որպես պարգևատրող նյութ օգտագործելու եզակի ասպեկտը թույլ է տալիս մեզ ներառել հիպոթալամուսային մուտքերը պարգևատրման սխեմաների համար այնպիսի ֆենոտիպում, որը կարող է կանխատեսել բուժմանը դիմացկուն ճարպակալման նախատրամադրված բնակչությանը: Այս վարկածը ուսումնասիրելու համար մենք ուսումնասիրեցինք դոֆամինի նեյրոհաղորդման մարկերները, այդ թվում՝ pCREB, BDNF և DARPP-32 NAc-ում և թիրոզին հիդրօքսիլազում, ինչպես նաև դոֆամինի փոխադրիչը VTA-ում՝ HF ազդեցությունից հետո: Մենք նաև ուսումնասիրեցինք էներգետիկ հաշվեկշռի որոշակի մարկերներ, որոնք հայտնի են դոֆամինի արտազատման վրա ազդելով, այդ թվում՝ լեպտինի և օրեքսինի ընկալիչները VTA-ում և օրեքսինի արտահայտությունը կողմնային հիպոթալամուսում:
Նյութեր եւ մեթոդներ
Կենդանիներ
Ամերիկացի դիվանագիտական բժշկության կենտրոնում եւ Dorsal striatum- ում (Kelz et al., 1999) դինորֆին-դրական նեյրոններում ΔFosB- ը ստեղծվել է խառը ֆոնի վրա (ICR: C57Bl6 / SJL) Տեխասի հարավային բժշկական կենտրոնի համալսարանում եւ պահպանվել եւ փորձարկվել է Փենսիլվանիայի համալսարանում: Բոլոր մկները պահպանվել են դոկտիքսիիկլինում (խմելու ջրի մեջ 100 μg / մլ), մինչեւ Փենսիլվանիայի համալսարան ժամանումը: Հանգստացնելը գերազանցեցնելու համար դոկիքսցիկլին հանվեց (n = 23) (12): Վերահսկիչ մկները (n = 26) շարունակեցին ստանալ դեղը: Մկները նշանակվել են դիետիկ խմբերում ութ շաբաթ տեւողությամբ doxycyline- ի հեռացումից հետո, որի ժամանակ արտահայտությունը ցուցադրվել է առավելագույն մակարդակներում (13): Մկները պահպանվեցին 12- ի վրա, 12 թեթեւ մութ ցիկլով (լույսերը 0700- ում), սննդով եւ ջրի մատչելիությամբ: Բոլոր ուսումնասիրությունները կատարվել են Փենսիլվանիայի ինստիտուցիոնալ Կենդանիների խնամքի եւ օգտագործման կոմիտեի կողմից հաստատված փորձնական արձանագրությունների համաձայն, եւ բոլոր ընթացակարգերը իրականացվել են ըստ ինստիտուցիոնալ ուղեցույցների:
Դիետիկ ազդեցություն
Մկները պահվում էին տան տապակով (n = 16) կամ վեց շաբաթվա ընթացքում տեղադրված HF- ի վրա (n = 16-17): Տունը chow (Purina Lab Diet, Սեն - Լուի, MO) պարունակում է 4.00 կկալ / գ, որը բաղկացած է 28% սպիտակուցից, 12% ճարպից եւ 60% ածխաջրածինից: HF diet (Research Diets, New Brunswick, NJ) պարունակում է 4.73 կկալ / գ, որը բաղկացած է 20% սպիտակուցից, 45% ճարպից եւ 35% ածխաջրածինից:
Կենսաքիմիա եւ գենային արտահայտություն
Միսները վերլուծվել են վեց շաբաթ դիետայի ազդեցությունից հետո: Բանգերը հեռացան գանգից եւ սառեցված ամբողջը չոր սառույցի կամ NAc- ով (մոտավորապես 0.5- 1.75 մմ ից bregma- ից, 3.5-5.5 մմ խորության վրա) եւ սառեցված հեղուկ ազոտում: Հյուսվածքները պահվում էին մինչեւ 80 ° C մինչեւ փորձարկված:
Կենսաքիմիական անալիզներ
Արեւմտյան բլոտների մեթոդները ներկայացված են լրացուցիչ նյութերում: Օգտագործվող հակամարմինները հետեւյալն էին. Cdk5, CREB եւ BDNF (1: 500, Santa Cruz Biotechnology, Santa Cruz, CA) եւ phospho-CREB (pCREB) (Ser 133) (1: 500, Cell Signaling Technology, Danvers, MA):
Receptor autoradiography- ը
Ատորադիոգրաֆիայի մանրամասն մեթոդները նկարագրվում են լրացուցիչ նյութերում: Ligands օգտագործվում էին 2 nM H3 - SCH 23390 եւ 5 nM H3 - spiperone (PerkinElmer, Բոստոն, MA):
In situ hybridization- ը
Հյուսվածքների մշակման եւ հիբրիդացման աշխատանքները կատարվել են նախկինում նկարագրված (14): DARPP-32- ի հետախուզությունը տրամադրվել էր P. Greengard- ի կողմից (Rockefeller համալսարան) եւ J. Elmquist- ի (The Texas Southwestern Medical Center համալսարանի) հետաքննություն: DARPP-32- ի համար փորձարկված սլայդներ 3 օրվա ընթացքում ֆիլմի վրա դրվել են, իսկ 4 օրվա ընթացքում ֆիլմի համար կիրառվում են քսաներկու օրոք փորձված սլայդներ: Ֆիլմի նկարների քանակի նկարագրությունը կատարվել է նախկինում նկարագրված (10):
QRT-PCR
RNA- ն մեկուսացված էր VTA- ից եւ TaqMan- ի գեն արտահայտության փորձարկումներից (Applied Biosystems, Foster City, CA) օգտագործած անհատ գեների արտահայտությունը: Մանրամասն մեթոդները եւ վիճակագրական վերլուծությունները կարելի է գտնել լրացուցիչ նյութերում:
Վարքագծային վերլուծություններ
Դիետայի հետ կապված վարքային փոփոխությունների վրա պտուղների զգայունության հետեւանքների ուսումնասիրման նպատակով մկների ենթաբազմություն ՀՖ-ից դուրս է մնացել չորս շաբաթվա ընթացքում եւ վերադարձվել է տնային chow (n = 9 հսկողություն, n = 8 ΔFosB): Հեռանալուց հետո քսանչորս ժամ հետո, մկները ենթարկվեցին բաց դաշտային փորձությանը, համաձայն մեր նախկինում հրապարակված դիետիկ հանելուն պարադիգմը (10): Մի խոսքով, մկնիկը տեղադրվեց բաց դաշտի ապարատի կենտրոնում եւ հինգ րոպեի ընթացքում դիտարկվեց: Ընդհանուր գծի խաչերը, փետուրները, կենտրոնը եւ խաչերը կենտրոնում էին:
Վիճակագրություններ
Բոլոր տվյալները, բացառությամբ Western blots- ի, վերլուծվել են երկկողմանի ANOVA- ի միջոցով, որին հաջորդել է Fisher's PLSD թեստը `դոքսիցիկլինով բուժմամբ (ΔFosB արտահայտություն) և դիետայի պայմանով` որպես անկախ փոփոխականներ: RT-PCR վերլուծության համար օգտագործվել է իջեցված P արժեք ՝ հարակից գեների խմբերի բազմակի համեմատությունները շտկելու համար (տե՛ս լրացուցիչ նյութեր): Western բլոտները վերլուծվել են `օգտագործելով ուսանողի t-test- ը դոքսիցիկլինով բուժմամբ` որպես անկախ փոփոխական, համեմատելով օպտիկական խտությունները նույն բլոտի մեջ: Բոլոր տվյալները ներկայացվում են որպես միջին ± SEM:
Արդյունքներ
Բազային կենսաքիմիական տարբերություններ
Որպեսզի պարզաբանենք ΔFosB- գերարտահայտող մկների ուժեղ հատուցման զգայունության հիմքում ընկած մոլեկուլային ուղիները, NAc- ում հետազոտվել են մի քանի առանցքային ազդանշանային մոլեկուլների մակարդակները: ԴFosB մկների NAc- ում Cdk5- ի մակարդակի բարձրացման միտում կար `համեմատած դոքսիցիկլինի վրա պահվող աղբահավաք կենդանիների հետ (F = 5.1, P = 0.08; Նկար 1A): ΔFosB մկները զգալիորեն կրճատել են pCREB- ի մակարդակները (F = 7.4, P <0.05; Նկար 1B), ինչպես նաև CREB- ի ընդհանուր մակարդակները (F = 5.4, P = 0.05; Նկար 1C): BDNF- ի զգալի նվազում է նկատվել նաև ΔFosB մկների NAc- ում (F = 10.6, P <0.05; Նկար 1D):
Նկար 1
ΔFosB- ի գերբնակեցված մկները ցուցադրեցին ԱՀ-ում կրճատված դոպամինային ազդանշանների կենսաքիմիական նշագրերը
Սննդի ընդունման եւ մարմնի քաշը բարձր ճարպային դիետայի վրա
Մենք հաջորդ անգամ ուսումնասիրեցինք ΔFosB- գերարտահայտող մկների ազդանշանային մոլեկուլների փոփոխությունների վրա բնականաբար հատուցող HF դիետայի ազդեցությունը: Չկան տարբերություններ ΔFosB մկների և հսկողության մեջ `տան կամ HF- ի սննդի ընդունման մեջ: Այնուամենայնիվ, տեղի ունեցավ մարմնի քաշի նորմալացված կալորիականության ընդունման ընդհանուր նվազում, երբ ենթարկվեց HF- ին, որը հատուկ էր ΔFosB մկներին (F = 11.2, P <0.01; նկ. 2A): Դիետայի ազդեցության վեց շաբաթվա վերջում HF ստացող մկները զգալիորեն ավելի էին կշռում, քան չոու դիետան ունեցողները (F = 17.2, P <0.001), իսկ ΔFosB մկները ընդհանուր առմամբ ավելի քիչ էին կշռում, քան կառավարիչները (F = 5.6, P <0.05; նկ. 2): 0.05 Բ) Այս ազդեցությունը հատուկ էր չոու դիետայի խմբերի տարբերություններին (P <XNUMX):
Նկար 2
ΔFosB- ն գերազանցող ճնշումը սերմնացուի մեջ չի հայտնաբերվել սննդի ընդունման տարբերություններով, թե ճարպով կամ բարձր յուղով (HF) դիետայում
Բիոքիմիական տարբերություններ, բարձր ճարպային դիետայի վրա
Որոշել, թե ինչպես է ՀՍ-ի ազդանշանի բազային տարբերությունները կարող են փոփոխվել HF- ի դիետայի կողմից, նույն նիշային պրոտեինները, որոնք ուսումնասիրվել են բազիսում, հետազոտվել են կենդանիների կողմից, որոնք ստացել են վեց շաբաթվա HF- ն: Cdk5 մակարդակներում զգալի տարբերություններ չկար (Նկար 3A): Չափերի քանակը pCREB- ի եւ ընդհանուր CREB- ն այլեւս այլեւս 6 շաբաթվա HF- ից հետո (Նկար 3B, C): BFNF- ի մակարդակները զգալիորեն բարձրացվել են ΔFosB մկների մեջ, վեց շաբաթվա HF- ի ազդեցությունից հետո (F = 6.5, P = 0.05, Նկար 3D):
Նկար 3
Բարձր յուղ (HF) դիետան բարելավեց ազդանշանի տարբերությունները, որոնք նկատվում են ΔFosB- ի արտանետման մկների վրա
Dopamine- ի վերափոխման autoradiography
Մենք օգտագործեցինք ընկալիչների ավտորադիոգրաֆիան ՝ գնահատելու համար, թե արդյոք NAF- ում դոֆամինի ազդանշանային ΔFosB- ի կողմից հարուցված փոփոխությունները կապված են դոպամինի ընկալիչների արտահայտության փոփոխությունների հետ (նկ. 4 Ա): Բարձր յուղայնությամբ դիետան, կարծես, փոքր-ինչ ավելացնում է D1 դոպամինի ընկալիչների պարտադիր խտությունը (P = 0.14), և այս տարբերությունն ավելի մեծ էր ΔFosB մկների մոտ (նկ. 4B): Նաև կար մի միտում դեպի աճ DF- ի պարտադիր տարածքը HF- ից հետո (P = 1), և հետընտրական փորձարկումները ցույց տվեցին, որ դա նշանակալի է ΔFosB մկների մոտ (P <0.06; Նկար 0.05C): Ի տարբերություն D4 ընկալիչների ՝ D1 ընկալիչների պարտադիր խտության փոփոխություններ (հսկիչ մթնոլորտ = 2 ± 97.6, հսկիչ HF = 6.9 ± 101.1, ΔFosB շոու = 8.2 ± 91.6, ΔFosB HF = 1.0 ± 94.8) կամ պարտադիր տարածքը (հսկիչ շոու = 9.5 Դիտվել են c 47.3, հսկիչ HF = 3.4 ± 53.8, ΔFosB chow = 6.0 ± 51.9, ΔFosB HF = 3.7 ± 49.0) NAc- ում:
Նկար 4
Բարձր ճարպային դիետան (HF) հանգեցրեց D1- ի դոպամինային ընկալիչի պարտադիր փոփոխությունների եւ DARPP-32- ի արտացոլմանը ΔFosB գերազանցող ճնշման մկների միջուկի accumbens- ում (NAc)
DARPP-32 արտահայտությունը NAc- ում
In situ հիբրիդացումը օգտագործվել է NAc- ում DARPP-32- ի արտահայտման մակարդակները որոշելու համար (նկ. 4D): Բարձր յուղայնությամբ դիետան էապես բարձրացրեց DARPP-32 արտահայտությունը ուղեղի այս շրջանում (F = 5.1, P <0.05), և կար զգալի փոխազդեցություն դիետայի և ΔFosB արտահայտության (F = 8.9, P <0.05) միջև, ΔFosB մկների մոտ սննդակարգով պայմանավորված փոփոխություն (նկ. 4E): DARPP-32 արտահայտության բազային տարբերությունը հսկողության և ΔFosB մկների միջև պարզվել է հետընտրական փորձարկումներով (P <0.01), ինչպես նաև DFPB-32 մկների HF- ի վրա DARPP-0.01 արտահայտման զգալի աճով (P <XNUMX):
Գեն արտահայտությունը VTA- ում
QRT-PCR- ն օգտագործվել է VTA- ում գենի արտահայտման փոփոխությունները գնահատելու համար ՝ նպատակաուղղելով մի քանի հիմնական գեների, որոնք նախկինում ներգրավված էին պարգևի կարգավորման մեջ: Բոլոր նմուշները նորմալացվել են β-ակտինի: Ապահովելու համար, որ β-ակտինի արտահայտությունը չի փոխվել բուժման միջոցով, կատարվել է առանձին փորձություն ՝ β-ակտինը համեմատելու երկրորդ ներքին հսկողության ՝ GAPDH- ի հետ: Β-ակտինի արտահայտման մեջ էական տարբերություններ չկան (ΔCT արժեքներ, β-ակտին - GAPDH ՝ հսկիչ շոու = 2.29 ± 0.21, հսկիչ HF = 2.01 ± 0.04, ΔFosB շոու = 2.32 ± 0.49, ΔFosB HF = 2.37 ± 0.10):
Տիրոզին հիդրոքիլազի արտահայտման համար նկատվել է ΔFosB արտահայտման և դիետիկ բուժման միջև փոխազդեցության միտում (F = 3.6, P <0.06; նկ. 5A): HF- ի ազդեցության վեց շաբաթը կարծես թե նվազեցրեց تیرոզինի հիդրօքսիլազի արտահայտությունը հսկիչ մկների մեջ և ավելացրեց արտահայտումը ΔFosB մկների մեջ: Դոպամինի փոխադրիչի արտահայտման համար նկատվել է զգալի փոխազդեցություն ΔFosB արտահայտման և դիետայի ազդեցության միջև (F = 6.7, P <0.03; Նկար 5B): Տիրոզինի հիդրոքիլազայի նման, HF- ի ազդեցությունը նվազեցրեց դոպամինի փոխադրիչի արտահայտությունը հսկիչ մկների մեջ և զգալիորեն ավելացրեց արտահայտությունը ΔFosB մկների մեջ (P <0.05): Դոպամինի փոխադրիչի արտահայտման հիմնական տարբերությունը հսկողության և ΔFosB մկների միջև նշանակության չի հասել (P = 0.16), բայց 6 շաբաթ տևողությամբ HF, ΔFosB մկները արտահայտել են դոպամինի փոխադրիչի զգալիորեն բարձր մակարդակները ՝ համեմատած հսկողության հետ (P <0.05):
Նկար 5
Բարձր ճարպային դիետայի (HF) ազդեցության եւ ΔFosB արտահայտությունը հանգեցրել է փոփոխությունների մի շարք առանցքային մոլեկուլների փոփոխության VTA
Գոյություն ուներ միտում, որը ցույց էր տալիս ավելացված ΔFosB արտահայտության ազդեցությունը VTA- ում TrkB մակարդակի իջեցման համար (F = 5.7, P <0.04; Նկար 5C): Չնայած κ-օփիոիդային ընկալիչների արտահայտման վրա հիմնական ազդեցությունները չկային, ΔFosB մկների մոտ արտահայտվածության արտահայտման միտում կար (P = 0.08; նկ. 5D): Լեպտինի ընկալիչի արտահայտությունը որոշվել է նաև VTA- ում: Հայտնաբերվել է դիետայի ազդեցության զգալի ազդեցություն (F = 6.1, P <0.03), HF- ն զգալիորեն նվազեցնում է լեպտինի ընկալիչի մակարդակը VTA- ում ինչպես ΔFosB- ի, այնպես էլ հսկիչ մկների մոտ (նկ. 5E): Ուսումնասիրվել է նաև VTA- ում orexin ընկալիչի արտահայտությունը: Դիետայի զգալի ազդեցություն կար օրեքսինի ընկալիչի արտահայտման վրա (F = 1, P <9.0), HF- ի ազդեցության տակ գտնվող մկների մոտ VTA- ում ավելի բարձր մակարդակ էին արտահայտում (նկ. 0.02F): ΔFosB մկների մոտ նաև ուղեղի այս շրջանում 5 – ի ընդհանուր ավելի բարձր մակարդակ արտահայտելու միտում կար (P <1):
Օրեկինի արտահայտությունը կողային հիպոթալամուսում
Մենք չափեցինք orexin- ի մակարդակները կողային հիպոթալամուսում, VTA- ի orexinergic innervation- ի ծագումը, in situ հիբրիդացման միջոցով (նկ. 6 Ա): Fգալի փոխազդեցություն էր ΔFosB արտահայտման և օրեքսինի արտահայտման վրա դիետայի ազդեցության միջև (F = 9.1, P <0.01), HF- ն զգալիորեն մեծացնում էր հանքաքարի մակարդակը հսկիչ մկների մեջ (P <0.05) և արտահայտման նվազումը ΔFosB մկների մեջ (նկ. 6B): Չնայած բազալ վիճակում orexin- ի արտահայտման մեջ էական տարբերություններ չկային, 6 շաբաթ HF- ից հետո, ΔFosB մկները արտահայտում էին orexin- ի զգալիորեն նվազեցված մակարդակները ՝ համեմատած հսկողության հետ (P <0.05):
Նկար 6
Բարձր ճարպային (HF) դիետան ունեցել է տարբերակիչ ազդեցություն, որը գտնվում է վերահսկողության մեջ (Ctrl) եւ ΔFosB գերազանցող ճնշման մկների
Վարքային վերլուծություններ
Դիետայի փոփոխության արդյունքում գրգռման և հուզականության փոփոխությունները գնահատելու համար մկները ենթարկվել են բաց դաշտի փորձարկման HF դիետայի դադարեցումից հետո 24 ժամ անց (10): Ընդհանուր գծերի խաչերի վրա, որոնք գնահատվել են որպես գրգռման միջոց, էապես ազդել են ΔFosB արտահայտությունը (F = 6.6, P <0.05) և դիետան (F = 4.6, P <0.05; Նկար 7A): ΔFosB մկներն ավելի ակտիվ էին նոր միջավայրում, քան զսպանակները, իսկ հետընտրական փորձարկումները ցույց տվեցին, որ HF- ից դուրս բերված մկները զգալիորեն ավելի ակտիվ էին, քան նրանք, ովքեր ենթարկվում էին chow (P <0.05): Ֆեկալային բոլին հաշվարկվում էր որպես անհանգստության նման պահվածքի միջոց (10): ΔFosB- ի արտահայտման հիմնական ազդեցությունը կար (F = 10.2, P <0.01), ΔFosB- գերարտահայտող մկների մոտ նոր ֆեկալային բոլիներ արտադրելով վեպի միջավայրում, մասնավորապես տնային պայմաններում և HF- ի դուրսբերման խմբերում (նկ. 7 Բ): HF դիետայի վրա պահվող ΔFosB մկները ավելի քիչ ֆեկալային բոլի են առաջացրել, քան նրանք, ովքեր պահպանվել են ցնցուղի վրա, և նրանք, ովքեր դուրս են բերվել թեստից 24 ժամ առաջ: Հավանաբար, վերահսկիչ մկների վրա դիետա չի ազդել: Բաց դաշտի կենտրոնում անցկացրած ժամանակի վրա չկային ինչպես ΔFosB արտահայտության, այնպես էլ դիետայի էական հետևանքներ (հսկիչ մթնոլորտ = 14.5 3.1 վ, վերահսկիչ HF = 18.0 ± 3.2 վ, հսկողություն W / D = 15.4 ± 1.9 վ, ΔFosB շոու = 16.9 ± 2.4 վրկ, ΔFosB HF = 13.1 ± 3.9 վրկ, ΔFosB W / D = 19.8 ± 2.6 վրկ):
Նկար 7
ΔFosB- ի նկատմամբ արտահայտված մկները ավելի զգայուն էին բարձր ճարպային դիետայի (ՀՖ) հեռացման հետեւանքների նկատմամբ
Քննարկում
Ճարպակալման բուժման մեջ կա չափազանց շատ ուտելու և քաշի ավելացման նկատմամբ զգայունության վրա ազդող գործոնների բացահայտման կարևորագույն անհրաժեշտություն: Ուղեղի պարգևատրման ուղիները կարևոր դեր են խաղում համեղ սննդի և սննդակարգի փոփոխությունների մոտիվացիայի և դրանց արձագանքի մեջ (6, 10, 15, 16): Քանի որ օրեքսիգեն և անորեքսիգեն ազդանշանները կարող են անմիջականորեն ազդել պարգևատրման ազդանշանների վրա հիպոթալամուս-VTA-NAc շղթայի միջոցով, պարգևատրման կենտրոններում էներգիայով հարուստ համեղ դիետաներին արձագանքող գեների պարզաբանումը կարող է նոր թերապևտիկ թիրախներ ապահովել ճարպակալման բուժման մեջ (17, 18): Հետևաբար, մենք ուսումնասիրեցինք պարգևատրման և էներգետիկ հավասարակշռության ազդանշանների կենսաքիմիական և մոլեկուլային մարկերները հիպոթալամուս-VTA-NAc շղթայի երկայնքով՝ ի պատասխան ΔFosB գերարտահայտող մկների մոտ HF դիետայի՝ որպես պարգևատրման փոփոխությունների նկատմամբ զգայունության բարձրացման մոդել (13, 19, 20) և դիետայի դադարեցումից հետո վարքային զգայունության: Մենք ենթադրեցինք, որ ΔFosB մկների մոտ դոպամինի ազդանշանների բազալ դիսռեգուլյացիան կկարգավորվի HF դիետայի պարգևատրող ազդեցություններով՝ ընդգրկելով էներգետիկ հավասարակշռության ազդանշանների և դոպամինային համակարգի հատումը:
NAc-ում դոպամինային ազդանշանային դիսռեգուլյացիայի ցուցիչ մարկերները ուսումնասիրելու համար մենք ուսումնասիրեցինք D1 ընկալիչների մակարդակները և հոսանքն ի վար էֆեկտորները: Չնայած D1 ընկալիչի կապման մեջ էական տարբերություններ չկային, ΔFosB մկների մոտ HF ազդեցության մեջ կապի տարածքը մեծացնելու միտում կար : Սա հետաքրքիր է, քանի որ ΔFosB-ի ինդուկցիան դեղամիջոցի և բնական պարգևների միջոցով, կարծես, գերակշռում է դինորֆին-դրական ենթատիպի միջին փշոտ նեյրոններում, որոնք հիմնականում արտահայտում են D1 ընկալիչներ (9, 21): Հոսանքն ի վար դոպամինային ազդանշանային թիրախ pCREB-ի մակարդակները զգալիորեն նվազել էին ΔFosB մկների մոտ, ինչը նպաստում էր D1 ընկալիչի ակտիվացման նվազմանը ուղեղի այս շրջանում (22, 23): Հետաքրքիր է, որ մենք նաև հայտնաբերել ենք CREB-ի ընդհանուր մակարդակների զգալի նվազում ΔFosB մկների մոտ, ինչը ենթադրում է դոպամինային ազդանշանի փոխանցման հետագա նվազեցված կարողություն, որը կարող է երկրորդական լինել pCREB-ի երկարատև նվազման հետևանքով առաջացած հետադարձ կապի պատճառով (24): BDNF-ի արտահայտությունը կարգավորվում է pCREB-ով, բարձրանում է D1 ակտիվացման հետ և NAc-ում պարգևատրման հետ կապված նեյրոպլաստիկության կարևոր միջնորդ է (25, 26): Համապատասխանաբար, մենք հայտնաբերեցինք BDNF սպիտակուցի զգալի նվազում ΔFosB մկների NAc-ում:
NAc-ի բոլոր միջին փշոտ նեյրոնները արտահայտում են DARPP-32 (27): Դրա բազմաթիվ ներքևի էֆեկտորները այն դարձնում են կարևոր դերակատար պարգևատրման ուղիներում (28), և այն կապված է թմրամոլության և դոպամինային համակարգի հետ կապված այլ խանգարումների հետ, ներառյալ աֆեկտիվ խանգարումները և շիզոֆրենիան (27, 29): Մենք հայտնաբերել ենք DARPP-32 արտահայտման խորը բազալային նվազումներ ΔFosB մկների NAc-ում: DARPP-32 արտահայտությունը կարգավորվում է BDNF-ի կողմից, և, հետևաբար, նվազեցված արտահայտությունը կարող է ուղղակիորեն կապված լինել ΔFosB մկների մոտ հայտնաբերված BDNF մակարդակի նվազման հետ (27, 29, 30): DARPP-32-ի ֆոսֆորիլացման վիճակի նույնիսկ չափավոր փոփոխությունները կարող են հանգեցնել NAc-ի ներսում ներբջջային ազդանշանային ուղու էական փոփոխությունների (27): Նախորդ ուսումնասիրությունները ցույց են տվել, որ ΔFosB մկների մոտ DARPP-32 սպիտակուցի փոփոխություն չի եղել դոքսիցիկլինի 12-շաբաթյա հեռացումից հետո, երբ անցկացվել է ավելի լայն ստրիատալ գնահատում (31), ինչը ենթադրում է, որ ΔFosB-ի ազդեցությունը DARPP-32-ի վրա կարող է լինել ժամանակի և տարածաշրջանի համար հատուկ։
Մենք ենթադրեցինք, որ ΔFosB մկների NAc-ում դոֆամինի ազդանշանային ուղու ցուցանիշների կտրուկ նվազումը, հավանաբար, կապված է VTA դոֆամինի պրոյեկցիոն նեյրոնների փոփոխությունների հետ, չնայած որ ΔFosB-ն գերարտահայտված չէ այս նեյրոններում ։ Հետևաբար, մենք ուսումնասիրեցինք դոֆամինի հետ կապված գեների արտահայտությունը VTA-ում, ներառյալ թիրոզին հիդրօքսիլազը և դոֆամինի փոխադրիչը։ Թիրոզին հիդրօքսիլազի և դոֆամինի փոխադրիչի մակարդակները դրականորեն կապված են դոֆամինի արտազատման հետ։ ΔFosB մկների մոտ կար միտում՝ ցուցաբերելու թիրոզին հիդրօքսիլազի նվազում և դոֆամինի փոխադրիչի զգալի նվազում, որը համապատասխանում է NAc-ում դոֆամինի ազդանշանային ուղու դիսռեգուլյացիային ։ Քանի որ ΔFosB մկների VTA-ում դոֆամինի հետ կապված գեների այս բազալ նվազումները, ենթադրաբար, արտացոլում են NAc-ից փոփոխված հետադարձ կապը ΔFosB-ի երկարատև գերարտահայտման ընթացքում , մենք ուսումնասիրեցինք BDNF ընկալիչի՝ TrkB-ի արտահայտությունը որպես VTA-ին NAc հետադարձ կապի հնարավոր մեխանիզմ (32): Նման թիրոզին հիդրօքսիլազին և դոֆամինի փոխադրիչին, TrkB-ի արտահայտությունը նույնպես ցույց տվեց ΔFosB մկների մոտ բազալային նվազման միտում, որը նշանակալիության չհասավ բազմակի համեմատությունների համար շտկվելիս: BDNF-TrkB համալիրը կարող է հետադարձ կերպով տեղափոխվել և գործել VTA-ի ներսում՝ ազդելով տեղային գեների արտահայտման վրա և խթանելով բջիջների աճը և պահպանումը (33): Ավելին, NAc-ի ներսում պրեսինապսային TrkB-ի BDNF ակտիվացումը կարող է ուղղակիորեն խթանել դոֆամինի նեյրոհաղորդումը (32), ինչը նպաստում է այս մկների մոտ դոֆամինի ազդանշանային ուղու նվազմանը:
κ-օփիոիդային ընկալիչների դինորֆինային ակտիվացումը կարգավորում է դոպամինային ազդանշանային ուղին և հանդիսանում է մեկ այլ մեխանիզմ, որի միջոցով NAc-ը հետադարձ կապ է ապահովում VTA-ի հետ (34): Մենք պարզեցինք, որ VTA-ում κ-օփիոիդային ընկալիչների արտահայտությունը ΔFosB մկների մոտ նվազման միտում է ցուցաբերել: Քանի որ ΔFosB գերարտահայտումը, ինչպես ցույց է տրվել, նվազեցնում է դինորֆինի արտահայտությունը NAc-ում (20), ΔFosB մկների մոտ, հավանաբար, խորը նվազում է զուտ VTA κ- օփիոիդային ակտիվացումը: Չնայած դինորֆինային ազդանշանային ուղին սովորաբար արգելակող ազդեցություն է ունենում դոպամինային նեյրոնների վրա (35), առնետները, որոնք ցուցաբերում են չարաշահման դեղերի ինքնուրույն ընդունման ուժեղացում, ցուցաբերում են դինորֆինի մակարդակի նվազում NAc-ում, ինչը մատնանշում է դինորֆինի հիմնական նվազեցված ազդանշանային ուղու դերը պարգևատրման զգայունության բարձրացման գործում (36, 37): Դինորֆին-κ-օփիոիդային համակարգի դիսռեգուլյացիան կապված է թմրանյութերի չարաշահման ձեռքբերման և շարունակականության հետ, ինչը նպաստում է օփիոիդային ազդանշանային ուղու կարևոր հավասարակշռությանը դոպամինային ուղիների նորմալացման գործում (38):
Էներգիայի մեջ խիտ HF դիետայի պարգևատրող ունակության հիման վրա մենք ենթադրեցինք, որ ΔFosB մկների մոտ դոպամինի և օփիոիդային պարգևատրման ազդանշանների դիսռեգուլյացիան կնախատրամադրի այս մկներին նման դիետայի նկատմամբ պարգևատրման ուժեղացված արձագանքների, այդպիսով նորմալացնելով պարգևատրման համակարգը հիպոթալամուս-VTA-NAc շղթայի ակտիվացման միջոցով : Վեց շաբաթ տևած դիետայի ընթացքում ΔFosB և վերահսկիչ մկների միջև սննդի ընդունման տարբերություններ չեն նկատվել, ինչը ենթադրում է, որ ΔFosB մկների մոտ պարգևատրման ազդանշանների կենսաքիմիական և մոլեկուլային մարկերներում հայտնաբերված փոփոխությունները պայմանավորված չեն սպառված կալորիաների տարբերություններով: Ինչպես և սպասվում էր, ΔFosB և վերահսկիչ մկների միջև pCREB, ընդհանուր CREB, BDNF, DARPP-32 և κ-օփիոիդային ընկալիչների մակարդակներում հայտնաբերված բազալ տարբերությունները թուլացել են, հավանաբար HF-ի վրա ΔFosB մկների մոտ դոպամինի արտադրության աճի պատճառով (29, 39-41):
ՎՏԱ-ում տիրոզին հիդրօքսիլազի և դոֆամինի փոխադրիչի ուսումնասիրությունը բացահայտեց ΔFosB և վերահսկիչ մկների զարմանալիորեն հակառակ արձագանքները HF2-ից հետո : Վերահսկիչ մկները ցույց տվեցին տիրոզին հիդրօքսիլազի և դոֆամինի փոխադրիչի արտահայտման նվազում, մինչդեռ ΔFosB մկները ցուցաբերեցին այս երկու դոֆամինի հետ կապված գեների արտահայտման աճ: Հետաքրքիր է, որ տիրոզին հիդրօքսիլազի արտահայտումը VTA-ում փոխվում է կոկաինի կամ մեթամֆետամինի քրոնիկ ընդունման հետևանքով (42-44), ինչը ենթադրում է, որ ΔFosB մկները կարող են HF-ի բնական պարգևը ավելի ակնառու համարել, քան վերահսկիչ մկները:
Որպեսզի ուսումնասիրել, թե ինչպես կարող է VTA- ին հնարավոր հիպոթալամիկ ներդրումը կարող է փոխանցել ազդանշաններ, որոնք արտացոլում են էներգետիկ հավասարակշռությունը, ուսումնասիրվել են նաեւ լեպրինի ընդունիչի եւ orexin reseptor-1- ի արտահայտությունը: Լյարդի շրջանագծային մակարդակները ավելանում են HF- ով, իսկ լապտինը կարող է իր հերթին գործել ՎՏԱ-ում, փոխելու դոպամինային ազդանշանը (18, 45): VTA- ի leptin- ի ընկալիչի արտահայտությունը նմանապես նվազել է HF- ի եւ ΔFosB- ի եւ հսկողության մկաններում `համապատասխան քաշի եւ դիետայի ընդունման դեպքում` HF- ում: Բարձր ճարպը նույնպես բարձրացրեց orexin reseptor-1- ի արտահայտությունը եւ ΔFosB- ի եւ վերահսկիչ մկների VTA- ում: Orexin- ը ակտիվացնում է ՎՏԱ-ի դոպամին նեյրոնները, նպաստում է VTA պլաստիկությանը եւ դանդաղեցնում է dc- ի մակարդակը (46-48): Բարձր ճարպային դիետան ցույց է տվել, որ մկների մեջ արտահայտվում է orexin արտահայտությունը, մեր դիտարկումների (49, 50): Այսպիսով, ավելցուկի վերափոխման արտահայտությունը, ինչպես նաեւ ՎՏԱ-ում լեյտինային ազդանշանների փոփոխությունները կարող են խթանել դիետային պարգեւը եւ ΔFosB- ում եւ վերահսկողության մկաններում, որոնք աջակցում են էներգիայի հավասարակշռության ազդանշանների փոխանցման ուղիների միջեւ եւ անմիջապես կապված վարձատրության հետ:
Պարգևատրման դադարեցման սթրեսային ազդեցությունները ուսումնասիրելու համար մկները հետազոտվել են բաց դաշտում HF-ի հեռացումից 24 ժամ անց: ΔFosB մկները ավելի զգայուն էին նախընտրելի դիետայի դադարեցման սուր ազդեցությունների նկատմամբ՝ նոր բաց դաշտում ցուցաբերելով գրգռման ակտիվության և կղանքի բոլիկների արտադրության բարձրացում՝ համեմատած մյուս բոլոր վերահսկիչ և դիետայի խմբերի հետ: ΔFosB մկները նաև այս թեստում ցույց տվեցին հետաքրքիր վարքային օրինաչափություն, որը ենթադրում էր պարգևատրման և սթրեսի նկատմամբ զգայունություն, որտեղ HF դիետան սկզբում նվազեցնում էր կղանքի բոլիկների արտադրությունը սննդի համեմատ, իսկ դադարեցումը կրկին մեծացնում էր այս անհանգստության հետ կապված արձագանքը: Բաց դաշտում ակտիվության այս դիտարկված աճը չէր համընկնում օրեքսինի արտահայտման փոփոխությունների հետ, ինչը ենթադրում է սթրեսի հետևանքով առաջացած գրգռման հետ կապ, որը պարզապես օրեքսինի միջնորդությամբ ազդանշանային փոփոխությունների ազդեցություն չէ: Ընդհանուր առմամբ, այս տվյալները հաստատում են մեր վարկածը, որ ΔFosB մկները ավելի զգայուն կլինեին նախընտրելի դիետայի դադարեցման սուր ազդեցությունների նկատմամբ՝ իրենց պարգևատրման նկատմամբ բարձրացված զգայունության պատճառով :
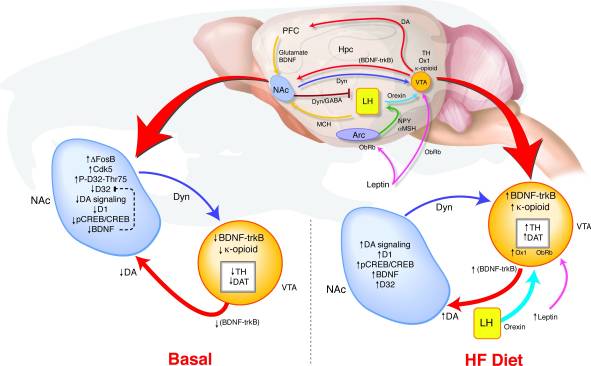
Ինչպե՞ս է ΔFosB-ի երկարատև գերարտահայտումը NAc-ում հանգեցնում վարքագծի և պարգևատրման ազդանշանների նման փոփոխությունների : Մենք առաջարկել ենք VTA համընկնող հայտնաբերման մոդել, որտեղ NAc-ից և հիպոթալամուսից փոփոխված հետադարձ կապը փոխանցում է պարգևատրման վիճակի վերաբերյալ ազդանշաններ՝ որոշելու դոպամինային համակարգի կարգավորումը, որը կարող է հաստատել պարգևատրման ուղու դիսռեգուլյացիայի և ճարպակալման նախատրամադրվածության միջև կապը (Նկար 8): ՀԴ ազդեցության ընթացքում VTA-ի վրա համընկնում են ինչպես էներգետիկ հաշվեկշիռը, այնպես էլ պարգևատրման վիճակը արտացոլող բազմաթիվ մուտքային ազդանշաններ: Լեպտինի և օրեքսինի ազդանշանների ավելացումը, ինչպես նաև NAc-ից կողմնային հիպոթալամուսին ուղղված փոփոխված հետադարձ կապը կարող են ազդել այն բանի վրա, թե ինչպես են այս օրեքսիգենիկ ազդանշանները արձագանքում ՀԴ-ին ΔFosB մկների մոտ (17, 18, 45, 47, 51-53): Բարձր ճարպային սննդակարգով պայմանավորված BDNF-ի բարձրացումը կարող է պարգևատրման հետադարձ կապ ապահովել VTA-ի համար, ինչը հետագայում նպաստում է դոֆամինի հետ կապված գեների արտահայտման փոփոխություններին:
Նկար 8
Բարձր յուղ (HF) դիետան նորմալացնում է ΔFosB մկների դիսռեգրված վարձատրության ազդանշանները
Այս արդյունքները սահմանում են պարգեւատրման զգայունության մոլեկուլային մարկերներ եւ նշում, որ դոպամինային համակարգի երկարատեւ քայքայումը կարող է կանխատեսել անհատին կախվածություն եւ գիրություն: Հետագայում այդ տվյալները կարեւոր քայլ են մղում պոտենցիալ նոր թերապեւտիկ թիրախները գիրության եւ այլ խանգարումների բուժման եւ կանխարգելման համար, որոնք կարող են կենտրոնանալ վարձատրության համակարգում: Հետագայում կարեւոր է ուսումնասիրել, թե ինչպես է այս համակարգը արձագանքում HF- ի սննդակարգի հեռացմանը, ինչպես նաեւ հետազոտելու սեռական տարբերությունները զգայունության եւ բարձր ճարպային դիետայի ազդեցության զգայունության հարցում:
Լրացուցիչ նյութեր
Supp. Մեթոդներ
Սեղմեք այստեղ դիտելու համար (61K, doc)
Acknowledgments
Հեղինակները ցանկանում են շնորհակալություն հայտնել Քեթի Շֆֆենին `կենդանական ծագման եւ փոխանցման օգնության համար: Այս աշխատանքը ֆինանսավորվել է Փենսիլվանիայի շաքարային դիաբետի համալսարանի (DK019525) դրամաշնորհով եւ Հոգեկան առողջության ազգային ինստիտուտի (R01 MH51399 եւ P50 MH66172) եւ Թմրամիջոցների չարաշահման ազգային ինստիտուտի (R01 DA07359) դրամաշնորհներով:
Հղումներ
Ֆինանսական բացահայտումներ. Բոլոր հեղինակները հայտարարում են, որ չունեն կենսաբժշկական ֆինանսական շահերը կամ հնարավոր շահերի բախումները:
Սայլակ
1. Wadden TA, Berkowitz RI, Womble LG, Sarwer DB, Phelan S, Cato RK, Hesson LA, Osei SY, Kaplan R, Stunkard AJ: Կենսակերպի փոփոխման եւ շաքարախտի դեղագործության ռանդալիզացված փորձարկում: N Engl J Med. 2005; 353 (20): 2111-20 [PubMed]
2. Blendy JA, Strasser A, Walters CL, Perkins KA, Patterson F, Berkowitz R, Lerman C. Կրճատվել է նիկոտինային պարգեւը գիրության մեջ `խաչաձեւ համեմատություն մարդու եւ մկնիկի մեջ: Psychopharmacology (Berl) 2005
3. Franken IH, Muris P. Պարգեւատրման զգայունության անհատական տարբերությունները կապված են առողջ կանանց սննդի խնամքի եւ հարաբերական մարմնի քաշի հետ: Ախորժակ: 2005; 45 (2): 198-201 [PubMed]
4. Kelley AE, Berridge KC- ն: Բնական պարգեւների նեվոլիզմը. J Neurosci. 2002; 22 (9): 3306-11 [PubMed]
5. Cagniard B, Balsam PD, Brunner D, Zhuang X. Խրոնիկ բարձրացված դոպամինով մկները ցուցադրվում են ուժեղացված մոտիվացիա, բայց ոչ սովորում, սննդի պարգեւի համար: Նյարդաբանության ֆակուլտետ: 2006; 31 (7): 1362-70 [PubMed]
6. Liang NC, Hajnal A, Norgren R. Sham կերակրման եգիպտացորենի նավթը մեծացնում է accumbens dopamine է առնետի. Բնապահպանական ֆիզիոլոգիա: 2006; 291 (5): R1236-9 [PubMed]
7. Մենդոզա Ջ, Անջելես-Կաստելլանոս Մ, Էսքոբար Ս. Ճաշացանկով ճաշացանկը առաջացնում է սննդամթերքի սպասողական գործունեություն եւ ուղեղի պարգեւատրման վայրերում c-Fos արտահայտություն: Neuroscience. 2005; 133 (1): 293-303 [PubMed]
8. Շրյոդեր Բ., Բիլզակ Ջ.Մ., Քելլի Է.Է. Նիկոտինի կամ շոկոլադի համակցված կոնտեքստային առարկաների ազդեցության հետեւանքով նախածրագրային կորտիկ ակտիվացման ընդհանուր պրոֆիլը: Neuroscience. 2001; 105 (3): 535-45 [PubMed]
9. Nestler EJ, Barrot M, Self DW- ն: DeltaFosB- ը կախվածության մեջ մշտական մոլեկուլային անջատիչ է: Proc Natl Acad Sci ԱՄՆ Ա. 2001; 98 (20): 11042-6: [PMC անվճար հոդված] [PubMed]
10. Teegarden SL, Bale TL- ն: Դիետիկ նախապատվության նվազում է առաջացնում աճող հուզական եւ ռիսկային ռեակցիա: Բիոլոգիական հոգեբուժություն: 2007; 61 (9): 1021-9 [PubMed]
11. Olausson P, Jentsch JD, Tronson N, Nestler EJ, Taylor JR- ը: dFosB- ն Nucleus Accumbens- ում կարգավորում է սննդամթերքի ամրապնդվող գործիքային վարքագիծը եւ մոտիվացումը: Նյարդաբանության ամսագիր: 2006; 26 (36): 9196-9204 [PubMed]
12. Chen J, Kelz MB, Zeng G, Sakai N, Steffen C, Shockett PE, Picciotto MR, Duman RS, Nestler EJ: Տրանսգենային կենդանիներ, որոնք ուղեկցվում են ընկճված, նպատակային գենային արտահայտությամբ: Մոլ Pharmacol. 1998; 54 (3): 495-503 [PubMed]
13. Քել Ջի, Քեն Ջ, Կառլիզոն Վ.Ա., Ջր, Ուիսլեր Ք, Գիլդեն Լ, Բեքման AM, Steffen C, Zhang YJ, Marotti L, Self DW, Tkatch T, Baranauskas G, Surmeier DJ, Neve RL, Duman RS, Picciotto MR, Nestler EJ- ն: ԴելտաՖոսԲ-ի փոխանցման գործոնի արտահայտումը ուղեղում վերահսկում է կոկաինի զգայունությունը: Բնություն: 1999; 401 (6750): 272-6 [PubMed]
14. Bale TL, Dorsa DM- ն: Էսստրոգինի սեքսի տարբերությունները եւ հետեւանքները օքսիտոցինի ընկալիչի սուրհանդակային ռիբոնուկլեինային թթվի արտահայտման համար `ventromedial hypothalamus- ում: Էնդոկրինոլոգիա: 1995; 136 (1): 27-32 [PubMed]
15. Avena NM, Long KA, Hoebel BG- ը: Շաքարի կախված առնետները ցույց են տալիս, որ շաքարավազը շեղումից հետո ուժեղացնում է շաքարավազի զրկանքների ազդեցությունը: Physiol Behav- ը: 2005; 84 (3): 359-62 [PubMed]
16. Will MJ, Franzblau EB, Kelley AE. Nucleus accumbens mu-opioids- ը կարգավորում է բոված ուղեղի ցանցի ակտիվացման միջոցով բարձր ճարպային դիետայի ընդունումը: J Neurosci. 2003; 23 (7): 2882-8 [PubMed]
17. Zheng H, Patterson LM, Berthoud HR- ն: Վիրահատական շրջանում Orexin ազդանշան պահանջվում է բարձր ճարպային ախորժակի համար, որը հանգեցնում է միջուկի երիկամների օփիոիդային խթանմանը: J Neurosci. 2007; 27 (41): 11075-82 [PubMed]
18. Hommel JD, Trinko R, Sears RM, Georgescu D, Liu ZW, Gao XB, Thurmon JJ, Marinelli M, DiLeone RJ: Լեպտինային ընդունիչն ազդում է միջին խոռոչի դոպամինային նեյրոնների կողմից, կարգավորում է սնուցումը: Նյարդոն: 2006; 51 (6): 801-10 [PubMed]
19. Colby CR, Whisler K, Steffen C, Nestler EJ, Self DW- ն: DeltaFosB- ի ստերիլալ բջջային տիպի հատուկ գերբնակեցումը նպաստում է կոկաինի խթանմանը: J Neurosci. 2003; 23 (6): 2488-93 [PubMed]
20. Զաչարիո Վ, Բոլանոս CA, Selley DE, Theobald D, Cassidy MP, Kelz MB, Shaw-Lutchman T, Berton O, Sim-Selley LJ, Dileone RJ, Kumar A, Nestler EJ: ԴելտաՖոսԲ-ի համար կարեւոր դեր է մորֆինային ակցիայի միջուկի հագուկապի մեջ: Nat Neurosci. 2006; 9 (2): 205-11 [PubMed]
21. Lee KW, Kim Y, Kim AM, Helmin K, Nairn AC, Greengard P. Կոկաինի կողմից առաջացած dendritic ողնաշարի ձեւավորում D1- ում եւ D2 dopamine receptor- ի պարունակող միջին ճարպային նեյրոնների միջուկում accumbens- ում: Proc Natl Acad Sci ԱՄՆ Ա. 2006; 103 (9): 3399-404: [PMC անվճար հոդված] [PubMed]
22. Blendy JA, Maldonado R. Թմրամոլության գենետիկական վերլուծություն. CAMP արձագանքի տարրերի պարտադիր սպիտակուցի դերը: J Mol Med. 1998; 76 (2): 104-10 [PubMed]
23. Nestler EJ- ն: Թմրամոլության մոլեկուլային մեխանիզմները: Neuropharmacology. 2004; 47 1- ը, 24-32- ը: [PubMed]
24. Tanis KQ, Duman RS, Նյուտոն ՍՍ: CREB- ի պարտադիր եւ գործառույթը ուղեղի մեջ. Տարածաշրջանային առանձնահատկություն եւ էլեկտրոկոնվուլյուցիոն զավթման ներածություն: Բիոլոգիական հոգեբուժություն: 2007
25. Կումար Ա, Չոյի Ք, Ռենտալ Վ, Ցանկովա Ն.Մ., Theobald DE, Truong HT, Russo SJ, Laplant Q, Sasaki TS, Whistler KN, Neve RL, Self DW, Nestler EJ: Chromatin- ի վերափոխումը կոտրատորի մեջ կոկաինը ներգործող պլաստիկության հիմքում ընկած հիմնական մեխանիզմն է: Նյարդոն: 2005; 48 (2): 303-14 [PubMed]
26. Graham DL, Edwards S, Bachtell RK, Dileone RJ, Rios M, Self DW- ն: Դինամիկ BDNF- ի գործունեությունը կոկաինի օգտագործման հետ կապված միջուկի հագեցվածության մեջ մեծացնում է ինքնակազմակերպումը եւ վերականգնումը: Nat Neurosci. 2007; 10 (8): 1029-37 [PubMed]
27. Svenningsson P, Nairn AC, Greengard P. DARPP-32 միջնորդում է չարաշահման բազմաթիվ թմրանյութերի գործողությունները: Aaps J. 2005; 7 (2): E353-60: [PMC անվճար հոդված] [PubMed]
28. Palmer AA, Verbitsky M, Suresh R, Kamsens HM, Reed CL, Li N, Burkhart-Kasch S, McKinnon CS, Belknap JK, Gilliam TC, Phillips TJ: Միտերի տարբերությունը տարբերվում է մետամֆետամինի զգայունության համար: Mamm Genome- ը: 2005; 16 (5): 291-305 [PubMed]
29. Բոգուշ Ա, Pedrini S, Pelta-Heller J, Chan T, Yang Q, Mao Z, Sluzas E, Gieringer T, Ehrlich ME. AKT- ը եւ CDK5 / p35- ը միջնորդում են ուղեղի վրա հիմնված նյարոտրոֆիկ գործոնի DARPP-32- ի ներարկումը միջին խոշոր ցողունային նեյրոնների մեջ: Ջ Բիոլ Քեմ: 2007; 282 (10): 7352-9 [PubMed]
30. Benavides DR, Bibb JA: Cdk5- ի դերը թմրամոլության եւ պլաստիկության մեջ: Անն Նյու Յորքի Ակադ Սի. 2004; 1025: 335-44. [PubMed]
31. Bibb JA, Chen J, Taylor JR, Svenningsson P, Nishi A, Snyder GL, Yan Z, Sagawa ZK, Ouimet CC, Nairn AC, Nestler EJ, Greengard P. Կոքինի խրոնիկ ազդեցության հետեւանքները կարգավորվում են Cdk5 նեյրոնային սպիտակուցներով: Բնություն: 2001; 410 (6826): 376-80 [PubMed]
32. Blochl A, Sirrenberg C. Neurotrophins խթանում դոպամինի ազատ արձակել rare mesencephalic neurons միջոցով Trk եւ p75Lntr ընկալիչների. Ջ Բիոլ Քեմ: 1996; 271 (35): 21100-7 [PubMed]
33. Բերտոն O, McClung CA, Dileone RJ, Krishnan V, Renthal W, Russo SJ, Graham D, Tsankova NM, Bolanos CA, Rios M, Monteggia LM, Self DW, Nestler EJ: BDNF- ի հիմնական դերը մզոլիմիկ դոպամինային ճանապարհում `սոցիալական պարտության սթրեսի ժամանակ: Գիտություն. 2006; 311 (5762): 864-8 [PubMed]
34. Nestler EJ, Carlezon WA, Jr The mesolimbic dopamine պարգեւատրման միացում դեպրեսիայի. Բիոլոգիական հոգեբուժություն: 2006; 59 (12): 1151-9 [PubMed]
35. Ford CP, Beckstead MJ, Williams JT: Kappa opioid- ի սոմատոդենդրիտային դոպամինի արգելակման կանխարգելիչ ստորին հոսանքները: J Neurophysiol- ը: 2007; 97 (1): 883-91 [PubMed]
36. Nylander I, Vlaskovska M, Terenius L. Brain dynorphin եւ encephalin համակարգերը Ֆիշերի եւ Լյուիսի առնետներում. Մորֆինի հանդուրժողականության եւ հեռացման հետեւանքները: Brain Res. 1995; 683 (1): 25-35 [PubMed]
37. Nylander I, Hyytia P, Forsander O, Terenius L. Prodynorphin- ի եւ proenkephalin համակարգերի ալկոհոլային նախասիրությունների (AA) եւ ալկոհոլի խուսափման (ANA) առնետների տարբերությունները: Ալկոհոլի հիվանդանոց 1994; 18 (5): 1272-9 [PubMed]
38. Kreek MJ- ն: Կոկաին, դոպամին եւ ներածական օփիոիդային համակարգը: Ջ. 1996; 15 (4): 73-96 [PubMed]
39. Carlezon WA, Jr, Duman RS, Nestler EJ: CREB- ի բազմաթիվ դեմքեր: Թրենդներ Նյարդաբան: 2005; 28 (8): 436-45 [PubMed]
40. Dudman JT, Eaton ME, Rajadhyaksha A, Macias W, Taher M, Barczak A, Kameyama K, Huganir R, Konradi C. Dopamine D1 ընդունիչները միջնորդում են CREB ֆոսֆորալացմանը NMDA- ի ընկալիչի ֆոսֆորալացման միջոցով Ser897-NR1- ում: J Neurochem. 2003; 87 (4): 922-34 [PubMed]
41. Self DW- ն: Մեզոլիմիկ դոպամին համակարգում նեյրոհարդապետությունների կողմից թմրամիջոցների վերացման եւ դիտարկման վարքագծի կարգավորումը: Neuropharmacology. 2004; 47 1- ը, 242-55- ը: [PubMed]
42. Beitner-Johnson D, Nestler EJ- ն: Մորֆին եւ կոկաինը ընդհանուր քրոնիկական գործողություններ են վարում դոպինամիկ ուղեղի վարձատրության շրջաններում թիրոսինային հիդրոխիլազի վրա: J Neurochem. 1991; 57 (1): 344-7 [PubMed]
43. Lu L, Grimm JW, Շահամ Յ, Հույս BT: Քաղցկեղի նեյրոհարդապետությունների մեջ մեղվաբույծների եւ վրացական քաղցկեղային տարածքի մեջ, առաջին իսկ 90 օրվա ընթացքում, առնետների կոկաինի ինքնակազմակերպման պարտադիր ձգձգումը: J Neurochem. 2003; 85 (6): 1604-13 [PubMed]
44. Շեպարդ Ջ.Դ., Չուանգ Դ.Տ., Շահամ Յ., Մորալես Մ.- Մաթհամպեթամինի ինֆեկցիաների ազդեցությունը թիրոսինային հիդրոքսիլազի եւ դոպամինի փոխադրման մակարդակների վրա `առնետի մեսոլիմիկ եւ նիգրոստրիալալ դոպամինային ուղիների վրա: Psychopharmacology (Berl) 2006; 185 (4): 505-13 [PubMed]
45. Fulton S, Pissios P, Manchon RP, Stiles L, Ֆրանկ Լ., Pothos EN, Maratos-Flier E, Flier JS: Մետոակցեմենսների դոպամինային ուղիների լեպտինի կարգավորումը: Նյարդոն: 2006; 51 (6): 811-22 [PubMed]
46. Narita M, Nagumo Y, Miyatake M, Ikegami D, Kurahashi K, Suzuki T. Սպիտակուցային kinase C- ի ներարկում, որը բուսական դոպամինի մակարդակի orexin-induced բարձրացման եւ դրա հատուցող ազդեցություն է: Eur J Neurosci: 2007; 25 (5): 1537-45 [PubMed]
47. Նարիտա Մ, Նագումո Յ, Հաշիմոտո Ս, Խաթիբ Ջ, Միտակե Մ, Սաքուրայ Տ, Յանավիսավա Մ, Նակամաչի Տ, Շիոդա Ս, Սյուզուկի Տ. Ուղեղների արգասիքային համակարգերի ուղղակի ներգրավում մեքսոլիմիկ դոպամինային ուղիների ակտիվացումն ու համապատասխան վարքագծերը, որոնք առաջացրել են մորֆին: J Neurosci. 2006; 26 (2): 398-405 [PubMed]
48. Borgland SL- ի, Taha SA- ի, Sarti F- ի, Fields HL- ի, Bonci A- ի Orexin A- ի համար կարեւոր է կոպի համախտանիշի եւ սրտամկանի սինթեզի զգայունության առաջացման համար: Նյարդոն: 2006; 49 (4): 589-601 [PubMed]
49. Պարկ ES, Yi SJ, Kim JS, Lee HS, Lee IS, Seong JK, Jin HK, Yoon YS: Փոփոխություններ orexin-A- ի եւ neuropeptide Y- ի արտահայտությունը արագացված եւ բարձր ճարպային դիետայի սատկած առնետների հիպոթալամուսում: J Vet Sci. 2004; 5 (4): 295-302 [PubMed]
50. Wortley KE, Chang GQ, Davydova Z, Leibowitz SF- ն: Պեպտիդները, որոնք կարգավորում են սննդային ընդունումը. Hypertriglyceridemia- ի օրոք ավելանում է orexin- ի գենի արտահայտությունը: Բնապահպանական ֆիզիոլոգիա: 2003; 284 (6): R1454-65 [PubMed]
51. Չժեն Հ, Կորկեռն Մ, Ստոյովյան I, Պաթթերսոն Լ .Մ., Թիան Ռ, Բերտուդ Հ. Պեպտիդները, որոնք կարգավորում են սննդի ընդունումը. Ախորժակը ներգործող հոդակապի մանիպուլյացիան ակտիվացնում է հիպոթալամիկ orexin նեյրոնները եւ խոչընդոտում է POMC նեյրոնները: Բնապահպանական ֆիզիոլոգիա: 2003; 284 (6): R1436-44 [PubMed]
52. Baldo BA, Gual-Bonilla L, Sijapati K, Դանիել RA, Landry CF, Kelley AE: GECAA- ի ընկալիչների միջուկային միջամտության արգանդի ծակոտկենու արգելակման միջոցով orexin / hypocretin պարունակող հիպոթալամիկական նեյրոնների ենթաբազմության ակտիվացումը, բայց ոչ նոր վտանգավոր միջավայրի ազդեցության տակ: Eur J Neurosci: 2004; 19 (2): 376-86 [PubMed]
53. Harris GC, Wimmer M, Aston-Jones G. Դիրքը պտտման ձգտումներում կռունկ hypothalamic orexin նեյրոնների համար: Բնություն: 2005; 437 (7058): 556-9 [PubMed]