КОМЕНТАРИ: Како што ќе откријат подоцнежните студии, DeltaFosB е заедничкиот молекуларен прекинувач и за зависности од дрога и од однесувањето. Тоа е фактор на транскрипција што значи дека влијае на тоа кои гени се вклучени или исклучени. Како што е наведено на друго место, дрогите кои создаваат зависност ги киднапираат само нормалните механизми. Затоа е глупаво да се сугерира дека зависностите од однесувањето не можат да постојат.
Proc Natl Acad Sci US A. 2001 25 септември; 98 (20): 11042-11046.
doi: 10.1073 / pnas.191352698.
Ерик Ј. Нестлер*, Мишел Баро и Дејвид В. Селф
Оддел за психијатрија и центар за основна невронаука, Југозападен медицински центар на Универзитетот во Тексас, булевар Хари Хајнс 5323, Далас, TX 75390-9070
Апстракт
Долготрајноста на некои од абнормалностите во однесувањето што ја карактеризираат зависноста од дрога сугерира дека регулацијата на експресијата на нервните гени може да биде вклучена во процесот преку кој дрогите што се злоупотребуваат предизвикуваат состојба на зависност. Сè повеќе докази сугерираат дека транскрипцискиот фактор ΔFosB претставува еден механизам преку кој дрогите што се злоупотребуваат произведуваат релативно стабилни промени во мозокот што придонесуваат за фенотипот на зависност. ΔFosB , член на семејството на транскрипциски фактори Fos, се акумулира во подмножество на неврони на nucleus accumbens и dorsal striatum (мозочни региони важни за зависност) по повторена администрација на многу видови дроги што се злоупотребуваат. Слична акумулација на ΔFosB се јавува по компулсивно трчање, што сугерира дека ΔFosB може да се акумулира како одговор на многу видови компулсивно однесување . Важно е да се напомене дека ΔFosB опстојува во невроните релативно долги временски периоди поради неговата извонредна стабилност. Затоа, ΔFosB претставува молекуларен механизам што може да иницира, а потоа да одржи промени во генската експресија што опстојуваат долго по прекинувањето на изложеноста на лекови . Студиите кај индуцибилни трансгени глувци кои прекумерно го експресираат ΔFosB или доминантен негативен инхибитор на протеинот даваат директен доказ дека ΔFosB предизвикува зголемена чувствителност на ефектите во однесувањето на злоупотребата на дроги и, евентуално, зголемено однесување при барање дрога. Оваа работа го поддржува ставот дека ΔFosB функционира како еден вид одржлив „молекуларен прекинувач“ кој постепено ги претвора акутните реакции на лекови во релативно стабилни адаптации кои придонесуваат за долгорочната невронска и бихевиорална пластичност што е основа на зависноста.
Истражувањето за зависноста е фокусирано на разбирање на сложените начини на кои лековите за злоупотреба го менуваат мозокот за да предизвикаат абнормалности во однесувањето кои ја карактеризираат зависноста. Еден од критичните предизвици на теренот е да се идентификуваат релативно стабилни промени во мозокот предизвикани од лекови за да се земат предвид оние абнормалности во однесувањето кои се особено долготрајни. На пример, човек зависник може да има зголемен ризик за релапс дури и по години апстиненција.
Стабилноста на овие абнормалности во однесувањето доведе до сугестијата дека тие можат да бидат посредувани, барем делумно, преку промени во генската експресија (1-3). Според ова гледиште, повторената изложеност на злоупотреба на дрога постојано го нарушува преносот во одредени синапси во мозокот кои се чувствителни на лекот. Ваквите пертурбации на крајот сигнализираат преку интрацелуларни каскади на гласник до јадрото, каде што прво иницираат, а потоа одржуваат промени во експресијата на специфични гени. Примарен механизам преку кој патиштата на трансдукција на сигналот влијаат на генската експресија е регулацијата на транскрипциските фактори, протеини кои се врзуваат за регулаторните региони на гените и ја модифицираат нивната транскрипција.
Според тоа, една цел на истражувањето на зависноста е да се идентификуваат факторите на транскрипција кои се менуваат во мозочните региони вмешани во зависност по хронична администрација на лекови за злоупотреба. Неколку такви фактори на транскрипција се идентификувани во текот на изминатата деценија (1-6). Фокусот на овој преглед е на еден конкретен фактор на транскрипција наречен ΔFosB.
Индукција на ΔFosB со злоупотреба на лекови
ΔFosB, кодиран од генот fosB, е член на фамилијата на транскрипциони фактори Fos, кои исто така вклучуваат c-Fos, FosB, Fra1 и Fra2 (7). Овие протеини од семејството Fos се хетеродимеризираат со протеините од семејството Jun (c-Jun, JunB, или JunD) за да формираат активни фактори на транскрипција AP-1 (активатор протеин-1) кои се врзуваат за AP-1 места (консензусна секвенца: TGAC/GTCA) присутни во промоторите на одредени гени за да ја регулираат нивната транскрипција.
Овие протеини од семејството Fos се индуцираат брзо и минливо во одредени мозочни региони по акутна администрација на многу лекови за злоупотреба (сл. 1) (8-11). Истакнати региони се јадрото accumbens и дорзалниот стриатум, кои се важни посредници на бихејвиоралните реакции на лековите, особено нивните наградувачки и локомоторно-активирачки ефекти (12, 13). Овие протеини се враќаат на базалните нивоа за неколку часа по администрацијата на лекот.
Слика 1
Шема што ја прикажува постепената акумулација на ΔFosB наспроти брзата и минлива индукција на други протеини од семејството Fos како одговор на злоупотреба на лекови. (A) Авторадиограмот ја илустрира диференцијалната индукција на овие различни протеини со акутна стимулација (1-2 часа по еднократна изложеност на лек) наспроти хронична стимулација (1 ден по повторено изложување на лек). (B) Неколку бранови на протеини слични на Fos [составени од c-Fos (изоформи од 52 до 58 kDa), FosB (изоформи од 46 до 50 kDa), ΔFosB (изоформа од 33 kDa) и Fra1 или Fra2 (40 kDa)] се индуцирани во nucleus accumbens и дорзалните стриатални неврони со акутна администрација на лек што се злоупотребува. Исто така, се индуцираат биохемиски модифицирани изоформи на ΔFosB (35-37 kDa); и тие се индуцирани (иако на ниски нивоа) по акутна администрација на лек, но перзистираат во мозокот подолг период поради нивната стабилност. (В) Со повторена (на пр., двапати дневно) администрација на лекови, секој акутен стимул индуцира ниско ниво на стабилните ΔFosB изоформи, што е означено со долниот сет на преклопувачки линии што го означуваат ΔFosB индуциран од секој акутен стимул. Резултатот е постепено зголемување на вкупните нивоа на ΔFosB со повторени стимули за време на хроничен третман, што е означено со растечката постепена линија на графиконот.
Многу различни реакции се забележуваат по хронична администрација на лекови за злоупотреба (Сл. 1) . Биохемиски модифицираните изоформи на ΔFosB (молекуларна маса 35-37 kDa) се акумулираат во истите мозочни региони по повторено изложување на лекови, додека сите други членови на семејството Fos покажуваат толеранција (т.е. намалена индукција во споредба со почетните изложувања на лекови). Таквата акумулација на ΔFosB е забележана за кокаин, морфин, амфетамин, алкохол, никотин и фенциклидин e (11, 14-18). Постојат некои докази дека оваа индукција е селективна за подгрупата на средно боцкави неврони што содржат динорфин/супстанца P, лоцирани во овие мозочни региони (15, 17), иако е потребна повеќе работа за да се утврди ова со сигурност. Изоформите на ΔFosB од 35 до 37 kDa димеризираат претежно со JunD за да формираат активен и долготраен AP-1 комплекс во овие мозочни региони (19, 20). Овие ΔFosB изоформи се акумулираат со хронична изложеност на лекови поради нивниот извонредно долг полуживот (21), и затоа перзистираат во невроните најмалку неколку недели по прекинувањето на администрацијата на лекови. Интересно е да се забележи дека овие ΔFosB изоформи се високо стабилни производи на непосреден ран ген (fosB). Стабилноста на ΔFosB изоформите обезбедува нов молекуларен механизам со кој промените предизвикани од лекови во генската експресија можат да перзистираат и покрај релативно долгите периоди на прекинување на употребата на лекови.
Иако јадрото accumbens игра клучна улога во наградувачките ефекти на дрогата за злоупотреба, се верува дека функционира нормално преку регулирање на одговорите на природните засилувачи, како што се храната, пијалокот, сексот и социјалните интеракции (12, 13). Како резултат на тоа, постои значителен интерес за можна улога на овој мозочен регион во други компулсивни однесувања (на пр., патолошко прејадување, коцкање, вежбање итн.). Поради оваа причина, испитавме дали ΔFosB е регулиран во животински модел на компулсивно трчање. Навистина, стабилните изоформи од 35 до 37 kDa на ΔFosB се индуцираат селективно во јадрото на акумбенс кај стаорци кои покажуваат компулсивно однесување на трчање.†
Биохемиски идентитет на стабилни ΔFosB изоформи
Како што споменавме погоре, изоформите ΔFosB кои се акумулираат по хронична администрација на лек за злоупотреба или компулсивно трчање покажуваат молекуларна маса од 35-37 kDa. Тие може да се разликуваат од 33-kDa изоформата на ΔFosB што се индуцира брзо, но минливо по еднократно изложување на лекот (сл. 1) (14, 19, 22). Тековните докази сугерираат дека изоформата од 33 kDa е матичната форма на протеинот, која е изменета за да формира постабилни производи од 35 до 37 kDa (19, 21). Сепак, природата на биохемиската модификација која ја претвора нестабилната изоформа од 33 kDa во стабилни изоформи од 35 до 37 kDa, остана нејасна. Се шпекулира дека фосфорилацијата може да биде одговорна (11). На пример, индукцијата на ΔFosB е атенуирана кај глувците на кои им недостига DARPP-32, протеин збогатен со стриатал (23, 24). Бидејќи DARPP-32 ја регулира каталитичката активност на протеинот фосфатаза-1 и протеинот киназа А (25, 26), барањето за овој протеин за нормална акумулација на стабилните ΔFosB изоформи сугерира можна улога за фосфорилација во создавањето на овие стабилни производи.
Улогата на ΔFosB во пластичноста на однесувањето кон злоупотреба на лекови
Увидот во улогата на ΔFosB во зависноста од дрога доаѓа во голема мера од проучувањето на трансгени глувци кај кои ΔFosB може да се индуцира селективно во рамките на nucleus accumbens и други стриатални региони на возрасни животни (27, 28). Важно е да се напомене дека овие глувци прекумерно го експресираат ΔFosB селективно во невроните на шилестата средина што содржат динорфин/супстанца P, каде што се верува дека лековите го индуцираат протеинот. Фенотипот на однесувањето на глувците што прекумерно го експресираат ΔFosB, кој во многу аспекти наликува на животни по хронична изложеност на лекови, е сумиран во Табела 1. Глувците покажуваат зголемени локомоторни реакции на кокаин по акутна и хронична администрација (28). Тие исто така покажуваат зголемена чувствителност на наградувачките ефекти на кокаинот и морфинот во тестовите за условување на местото (11, 28) и ќе самоадминистрираат пониски дози на кокаин од соучениците што не го преекспресираат ΔFosB.‡ Спротивно на тоа, овие животни покажуваат нормална условена локомоторна сензибилизација на кокаин и нормално просторно учење во водниот лавиринт на Морис (28). Овие податоци покажуваат дека ΔFosB ја зголемува чувствителноста на животното на кокаин, а можеби и на други лекови и може да претставува механизам за релативно продолжена сензибилизација на лековите.
 стриатум
| Зголемена локомоторна активација како одговор на акутна и повторена администрација на кокаин. |
| Зголемени наградувачки одговори на кокаин и морфин во анализите за уредување место. |
| Зголемено само-администрација на ниски дози на кокаин. |
| Зголемена мотивација за кокаин во анализите на прогресивен сооднос. |
| Зголемени анксиолитички реакции на алкохол. |
| Зголемено однесување на компулсивно трчање. |
Врз основа на податоците во реф. 28 и 29. †‡ §¶
Пластичност на однесувањето посредувана од ΔFosB во јадрото accumbens-дорзален стриатум
Покрај тоа, постојат прелиминарни докази дека ефектите на ΔFosB може да се протегаат многу подалеку од регулирањето на чувствителноста на лековите сама по себе, на посложени однесувања поврзани со процесот на зависност. Глувците кои го експресираат ΔFosB работат понапорно за самостојно администрирање кокаин во тестови за самоадминистрирање со прогресивен сооднос, што сугерира дека ΔFosB може да ги сензибилизира животните кон стимулативните мотивациски својства на кокаинот и со тоа да доведе до склоност кон релапс по повлекувањето на дрогата .‡ Глувците кои експресираат ΔFosB, исто така, покажуваат зголемени анксиолитички ефекти на алкохолот, § фенотип кој е поврзан со зголемен внес на алкохол кај луѓето. Заедно, овие рани наоди сугерираат дека ΔFosB, покрај зголемената чувствителност на лекови за злоупотреба, произведува квалитативни промени во однесувањето кои го промовираат однесувањето на барање дрога. Така, ΔFosB може да функционира како одржлив „молекуларен прекинувач“ кој помага во иницирање, а потоа и одржување на клучните аспекти на состојбата на зависност. Важно прашање во тековната истрага е дали акумулацијата на ΔFosB за време на изложеноста на лекови го промовира однесувањето на барање дрога по продолжени периоди на повлекување, дури и откако нивоата на ΔFosB се нормализираат (видете подолу).
Возрасните глувци кои прекумерно го експресираат ΔFosB селективно во рамките на nucleus accumbens и дорзалниот стриатум, исто така, покажуваат поголемо компулсивно трчање во споредба со контролните легла.† Овие набљудувања ја зголемуваат интересната можност дека акумулацијата на ΔFosB во овие неврони служи за поопшта улога во формирањето и одржувањето на навиките и компулсивните однесувања, можеби со зајакнување на ефикасноста на нервните кола во кои функционираат тие неврони.
ΔFosB се акумулира во одредени региони на мозокот надвор од nucleus accumbens и дорзалниот стриатум по хронична изложеност на кокаин. Меѓу овие региони се истакнуваат амигдалата и медијалниот префронтален кортекс (15). Главна цел на тековните истражувања е да се разберат придонесите на индукцијата на ΔFosB во овие региони кон фенотипот на зависност.
Претходната работа на глувците со нокаут fosB откри дека овие животни не успеваат да развијат сензибилизација на локомоторните ефекти на кокаинот, што е во согласност со наодите на глувците со прекумерно изразување ΔFosB споменати погоре (22). Сепак, мутантите fosB покажаа зголемена чувствителност на акутните ефекти на кокаинот, што не е во согласност со овие други наоди. Сепак, толкувањето на наодите со мутантите на fosB е комплицирано од фактот дека на овие животни им недостасува не само ΔFosB, туку и FosB со целосна должина. Покрај тоа, на мутантите им недостигаат и протеини низ мозокот и од најраните фази на развој. Навистина, поновата работа ги поддржува заклучоците од глувците со прекумерно изразување ΔFosB: индуцираната прекумерна експресија на скратен мутант на c-Jun, кој делува како доминантен негативен антагонист на ΔFosB, селективно во јадрото accumbens и дорзалниот стриатум покажува намалена чувствителност на наградувачките ефекти на кока. .¶ Овие наоди ја нагласуваат претпазливоста што мора да се користи при толкувањето на резултатите од глувците со конститутивни мутации и ја илустрираат важноста на глувците со индуцирани и специфични мутации за клеточен тип во студиите за пластичност во мозокот на возрасен.
Целни гени за ΔFosB
Бидејќи ΔFosB е транскрипциски фактор, веројатно протеинот предизвикува пластичност во однесувањето преку промени во експресијата на други гени. ΔFosB се генерира со алтернативно сплајсирање на генот fosB и му недостасува дел од C-терминалниот трансакциски домен присутен во FosB со целосна должина. Како резултат на тоа, првично беше предложено дека ΔFosB функционира како транскрипциски репресор (29). Сепак, работата во клеточните култури јасно покажа дека ΔFosB може или да индуцира или да ја репресира транскрипцијата посредувана од AP-1 во зависност од конкретното место на AP-1 што се користи (21, 29–31). FosB со целосна должина врши исти ефекти како ΔFosB врз одредени фрагменти на промотори, но различни ефекти врз други. Потребна е понатамошна работа за да се разберат механизмите што лежат во основата на овие различни дејства на ΔFosB и FosB.
Нашата група користеше два пристапи за да ги идентификува целните гени за ΔFosB. Еден од нив е пристапот на кандидатскиот ген. Првично ги сметавме рецепторите за глутамат на α-амино-3-хидрокси-5-метил-4-изоксазолепропионска киселина (AMPA) како наводни цели, со оглед на важната улога на глутаматергичниот пренос во јадрото accumbens. Досегашната работа покажа дека една посебна подединица на рецепторот AMPA глутамат, GluR2, може да биде вистинска цел за ΔFosB (сл. 2). Експресијата на GluR2, но не и изразот на другите подединици на рецепторот AMPA, се зголемува во јадрото accumbens (но не и дорзалниот стриатум) при прекумерна експресија на ΔFosB (28), а изразувањето на доминантен негативен мутант ја намалува способноста на кокаинот да го индуцира протеинот.¶ Дополнително, промоторот на генот GluR2 содржи консензус AP-1 место што го врзува ΔFosB (28). Прекумерната експресија на GluR2 во јадрото accumbens, со употреба на пренос на ген со посредство на вируси, ја зголемува чувствителноста на животното на наградните ефекти на кокаинот, а со тоа имитирајќи дел од фенотипот што се гледа кај глувците што изразуваат ΔFosB (28). Индукцијата на GluR2 може да биде причина за намалената електрофизиолошка чувствителност на невроните на nucleus accumbens на агонисти на AMPA рецепторите по хронична администрација на кокаин (32), бидејќи AMPA рецепторите што содржат GluR2 покажуваат намалена вкупна спроводливост и намалена пропустливост на Ca2+. Намалената реакција на овие неврони на возбудливи влезови може потоа да ги подобри одговорите на злоупотреба на дрога. Сепак, начините на кои допаминергичните и глутаматергичните сигнали во nucleus accumbens го регулираат однесувањето на зависност остануваат непознати; ова ќе бара ниво на разбирање на нервните кола, кое сè уште не е достапно.
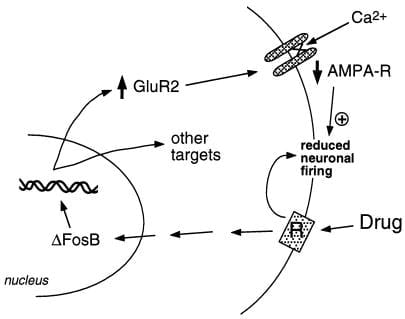
Слика 2
Под-единицата на глутаминскиот рецептор на AMPA, GluR2, е претпоставена цел за ΔFosB. Прикажано е како индукцијата на GluR2 посредувана од ΔFosB може да ја промени физиолошката реакција на невроните на nucleus accumbens и да доведе до сензибилизирани одговори на злоупотреба на лекови. Според оваа шема, злоупотребата на лекови ги создава своите акутни засилувачки ефекти преку инхибиција на невроните на nucleus accumbens. Со повторено изложување, лековите индуцираат ΔFosB, кој регулира бројни целни гени, вклучувајќи го и GluR2. Ова го зголемува процентот на AMPA рецептори (AMPA-R) на невроните на nucleus accumbens кои ја содржат GluR2 под-единицата, што предизвикува намалена вкупна струја на AMPA и намалена струја на Ca2+. Оваа намалена ексцитабилност би можела да ги направи невроните почувствителни на акутните инхибиторни ефекти на лековите, а со тоа и на засилувачките ефекти на лековите.
Друга претпоставена цел за ΔFosB е генот што го кодира динорфинот . Како што беше наведено претходно, динорфинот се експресира во подгрупата на средно бодликави неврони на nucleus accumbens кои покажуваат индукција на ΔFosB . Се чини дека динорфинот функционира во меѓуклеточна повратна јамка: неговото ослободување ги инхибира допаминергичните неврони кои ги инервираат средно бодликавите неврони, преку κ опиоидни рецептори присутни на допаминергичните нервни терминали во nucleus accumbens, а исто така и на клеточните тела и дендритите во вентралната тегментална област (Сл. 3) (33-35). Оваа идеја е во согласност со способноста на агонистот на κ рецепторот, по администрација во кој било од овие два мозочни региони, да ја намали наградата од лекот (35).
Неодамнешните истражувања покажаа дека ΔFosB ја намалува експресијата на динорфин, што би можело да придонесе за подобрување на механизмите за наградување што се гледаат со индукција на ΔFosB. Интересно е што друг транскрипциски фактор регулиран од лекови, CREB (cAMP response element linking protein) (2, 3), има спротивен ефект: тој индуцира експресија на динорфин во nucleus accumbens и ги намалува наградувачките својства на кокаинот и морфинот (4).**
Бидејќи активирањето на CREB предизвикано од лекови брзо се распаѓа по администрацијата на лекот, таквата реципрочна регулација на динорфинот од страна на CREB и ΔFosB би можела да ги објасни реципрочните промени во однесувањето што се јавуваат за време на раните и доцните фази на повлекување, со негативни емоционални симптоми и намалена чувствителност на лекови што преовладуваат во раните фази на повлекување, како и сензибилизација на наградувачките и стимулативните мотивациски ефекти на лековите што преовладуваат во подоцнежните временски точки.
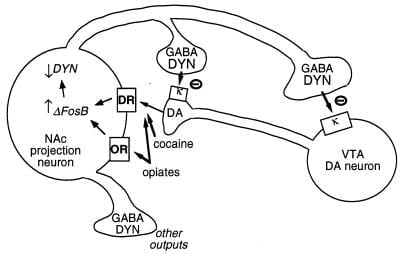
Слика 3
Динорфинот е претпоставена цел за ΔFosB. Прикажан е допамински (DA) неврон во вентралната тегментална област (VTA) кој инервира класа на GABAергични проекциски неврони на nucleus accumbens (NAc) кои експресираат динорфин (DYN). Динорфинот служи како механизам за повратна информација во ова коло: динорфинот, ослободен од терминалите на NAc невроните, делува на κ опиоидните рецептори лоцирани на нервните терминали и клеточните тела на DA невроните за да го инхибира нивното функционирање. ΔFosB , со инхибирање на експресијата на динорфин, може да ја намали оваа повратна јамка и да ги подобри наградувачките својства на дрогите што се злоупотребуваат. Не е прикажан реципрочниот ефект на CREB врз овој систем: CREB ја подобрува експресијата на динорфин и со тоа ги ослабува наградувачките својства на дрогите што се злоупотребуваат (4). GABA, γ-аминобутерна киселина; DR, допамински рецептор; OR, опиоиден рецептор.
Вториот пристап што се користи за да се идентификуваат целните гени за ΔFosB вклучува анализа на ДНК микросреди. Индуцираната прекумерна експресија на ΔFosB ја зголемува или намалува експресијата на бројни гени во јадрото accumbens (36). Иако сега е потребна значителна работа за да се потврди секој од овие гени како физиолошки цели на ΔFosB и да се разбере нивниот придонес во фенотипот на зависност, се чини дека една важна цел е Cdk5 (киназа-5 зависна од циклин). Така, Cdk5 првично беше идентификуван како ΔFosB-регулиран со употреба на микронизи, а подоцна се покажа дека е индуциран во јадрото accumbens и дорзалниот стриатум по хронична администрација на кокаин (37). ΔFosB го активира генот cdk5 преку AP-1 место присутно во промоторот на генот (36). Заедно, овие податоци поддржуваат шема каде што кокаинот предизвикува изразување на Cdk5 во овие мозочни региони преку ΔFosB. Се чини дека индукцијата на Cdk5 ја менува допаминергичната сигнализација барем делумно преку зголемена фосфорилација на DARPP-32 (37), која се претвора од инхибитор на протеинска фосфатаза-1 во инхибитор на протеин киназа А при неговата фосфорилација од Cdk5 (26).
Улогата на ΔFosB во посредувањето на „постојаната“ пластичност на дрогата за злоупотреба
Иако сигналот ΔFosB е релативно долготраен, тој не е траен. ΔFosB постепено се деградира и повеќе не може да се открие во мозокот по 1-2 месеци од прекинувањето на употребата на лекови, иако одредени абнормалности во однесувањето перзистираат многу подолги временски периоди. Затоа, ΔFosB сам по себе не би изгледал како да може да посредува во овие полутрајни абнормалности во однесувањето. Тешкотијата во пронаоѓањето на молекуларните адаптации што лежат во основата на екстремно стабилните промени во однесувањето поврзани со зависноста е аналогна на предизвиците со кои се соочуваме во полето на учењето и меморијата. Иако постојат елегантни клеточни и молекуларни модели на учење и меморија, досега не е можно да се идентификуваат молекуларни и клеточни адаптации кои се доволно долготрајни за да објаснат високо стабилни сеќавања во однесувањето. Всушност, ΔFosB е најдолготрајната адаптација за која се знае дека се јавува кај возрасен мозок, не само како одговор на злоупотреба на дроги, туку и на која било друга пертурбација (што не вклучува лезии). Еволуирале два предлози, и во полето на зависност и учење и меморија, за да се објасни ова несовпаѓање.
Една можност е дека поминливите промени во генската експресија, како оние посредувани преку ΔFosB или други транскрипциски фактори (на пр., CREB), може да посредуваат во подолготрајни промени во невронската морфологија и синаптичката структура. На пример, зголемувањето на густината на дендритичните боцки (особено зголемувањето на двоглавите боцки) ја придружува зголемената ефикасност на глутаматергичните синапси кај хипокампалните пирамидални неврони за време на долготрајната потенцијација (38-40), и е паралелно со зголемената чувствителност на однесувањето кон кокаин посредувана на ниво на средно боцкави неврони на nucleus accumbens (41). Не е познато дали ваквите структурни промени се доволно долготрајни за да објаснат високо стабилни промени во однесувањето, иако вторите перзистираат најмалку 1 месец од прекинувањето на лекот. Неодамнешните докази ја зголемуваат можноста дека ΔFosB и неговата индукција на Cdk5 е еден медијатор на промените предизвикани од лекови во синаптичката структура во nucleus accumbens (Сл. 4). ‡‡ Така, инфузијата на Cdk5 инхибитор во nucleus accumbens ја спречува способноста на повторената изложеност на кокаин да ја зголеми густината на дендритичниот 'рбет во овој регион. Ова е во согласност со ставот дека Cdk5, кој е збогатен во мозокот, ја регулира нервната структура и растот (видете ги реф. 36 и 37). Можно е, иако никако не е докажано, дека таквите промени во невронската морфологија може да го надживеат самиот сигнал ΔFosB.
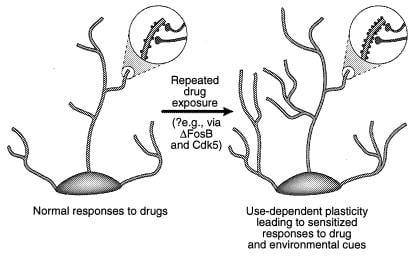
Слика 4
Регулирање на дендритичната структура со лекови за злоупотреба. Прикажано е проширувањето на дендритското дрво на невронот по хронична изложеност на злоупотреба на дрога, како што е забележано со кокаин во јадрото accumbens и префронталниот кортекс (41). Областите на зголемување покажуваат зголемување на дендритичните боцки, што се претпоставува дека се јавува во врска со активираните нервни терминали. Ова зголемување на густината на дендритичниот 'рбет може да биде посредувано преку ΔFosB и последователната индукција на Cdk5 (види текст). Ваквите промени во дендритската структура, кои се слични на оние забележани во некои модели на учење (на пример, долгорочно потенцирање), би можеле да посредуваат со долготрајни сензибилизирани одговори на лекови за злоупотреба или знаци на животната средина. [Репродуцирано со дозвола од ref. 3 (Авторски права 2001, Macmillian Magazines Ltd.)].
Друга можност е дека минливата индукција на транскрипциски фактор (на пр., ΔFosB, CREB) води до потрајни промени во генската експресија преку модификација на хроматините . Се верува дека овие и многу други транскрипциски фактори ја активираат или потиснуваат транскрипцијата на целниот ген со промовирање на ацетилацијата или деацетилацијата, соодветно, на хистоните во близина на генот (42). Иако таквата ацетилација и деацетилација на хистоните очигледно може да се случи многу брзо, можно е ΔFosB или CREB да произведат подолготрајни адаптации во ензимскиот механизам што ја контролира ацетилацијата на хистоните. ΔFosB или CREB, исто така, можат да промовираат подолготрајни промени во генската експресија со регулирање на други модификации на хроматинот (на пр., метилација на ДНК или хистони) кои се имплицирани во трајните промени во транскрипцијата на гени што се јавуваат за време на развојот (видете ги реф. 42 и 43). Иако овие можности остануваат шпекулативни, тие би можеле да обезбедат механизам со кој минливите адаптации на злоупотреба на дрога (или некоја друга пертурбација) водат до суштински доживотни последици во однесувањето.
Референци
- ↵
- Нестлер ЕЈ,
- Се надевам БТ,
- Виднел КЛ
(1993) Неврон 11:995-1006.
CrossRef Medline Web of Science
- ↵
- Берк Џ.Д.,
- Хајман С.Е
(2000) Неврон 25:515-532.
CrossRef Medline Web of Science
- ↵
- Нестлер ЕЈ
(2001) Nat Rev Neurosci 2:119-128.
CrossRef Medline Web of Science
- ↵
- Карлезон WA Џуниор,
- Thome J,
- Олсон В.Г.,
- Лејн-Лад СБ,
- Бродкин Е.С.,
- Хирои Н,
- Думан Р.С.,
- Неве РЛ,
- Нестлер ЕЈ
(1998) Наука 282:2272-2275.
Апстракт / БЕСПЛАТНО Целосен текст
-
- О'Донован КЈ,
- Туртелот WG,
- Милбрант Ј,
- Барабан Ј.М
(1999) Trends Neurosci 22:167-173.
CrossRef Medline Web of Science
- ↵
- Маклер СА,
- Корутла Л,
- Cha XY,
- Коеби МЈ,
- Фурние КМ,
- Боверс МС,
- Каливас ПВ
(2000) J Neurosci 20:6210-6217.
Апстракт / БЕСПЛАТНО Целосен текст
- ↵
- Морган Џи,
- Куран Т
(1995) Trends Neurosci 18:66-67.
CrossRef Medline Web of Science
- ↵
- Младиот С.Т.
- Порино ЛЈ,
- Јадарола МЈ
(1991) Proc Natl Acad Sci USA 88:1291-1295.
Апстракт / БЕСПЛАТНО Целосен текст
-
- Graybiel AM,
- Moratalla R,
- Робертсон Х.А
(1990) Proc Natl Acad Sci USA 87:6912-6916.
Апстракт / БЕСПЛАТНО Целосен текст
-
- Надеж Б,
- Кософски Б,
- Хајман СЕ,
- Нестлер ЕЈ
(1992) Proc Natl Acad Sci USA 89:5764-5768.
Апстракт / БЕСПЛАТНО Целосен текст
- ↵
- Келц МБ,
- Нестлер ЕЈ
(2000) Curr Opin Neurol 13:715-720.
CrossRef Medline Web of Science
- ↵
- Коб ГФ,
- Сана ПП,
- Блум FE
(1998) Неврон 21:467-476.
CrossRef Medline Web of Science
- ↵
- Мудриот РА
(1998) Зависност од алкохол од дрога 51:13-22.
CrossRef Medline Web of Science
- ↵
- Се надевам БТ,
- НЕ ТОЈ,
- Келц МБ,
- Само ДВ,
- Јадарола МЈ,
- Nakabeppu Y,
- Думан Р.С.,
- Нестлер ЕЈ
(1994) Неврон 13:1235-1244.
CrossRef Medline Web of Science
- ↵
- Нај Х,
- Се надевам БТ,
- Келц М,
- Iadarola M,
- Нестлер ЕЈ
(1995) J Pharmacol Exp Ther 275:1671-1680.
Апстракт / БЕСПЛАТНО Целосен текст
-
- НЕ ТОЈ,
- Нестлер ЕЈ
(1996) Мол Фармакол 49:636-645.
- ↵
- Moratalla R,
- Елибол Б,
- Валејо М,
- Грејбиел А.М
(1996) Неврон 17:147-156.
CrossRef Medline Web of Science
- ↵
- Пич ЕМ,
- Паглиуси СР,
- Тесари М,
- Талабот-Ајер Д,
- Хоуф ван Хуијсујнин Р,
- Chiamulera C
(1997) Наука 275:83-86.
Апстракт / БЕСПЛАТНО Целосен текст
- ↵
- Чен Ј.С.,
- НЕ ТОЈ,
- Келц МБ,
- Хирои Н,
- Nakabeppu Y,
- Се надевам БТ,
- Нестлер ЕЈ
(1995) Мол Фармакол 48:880-889.
- ↵
- Хирои Н,
- Браун Ј,
- Вие H,
- Сауду Ф,
- Ваидија ВА,
- Думан Р.С.,
- Гринберг ЈАС,
- Нестлер ЕЈ
(1998) J Neurosci 18:6952-6962.
Апстракт / БЕСПЛАТНО Целосен текст
- ↵
- Чен Ј,
- Келц МБ,
- Се надевам БТ,
- Nakabeppu Y,
- Нестлер ЕЈ
(1997) J Neurosci 17:4933-4941.
Апстракт / БЕСПЛАТНО Целосен текст
- ↵
- Хирои Н,
- Браун Ј,
- Хајле Ц,
- Вие H,
- Гринберг ЈАС,
- Нестлер ЕЈ
(1997) Proc Natl Acad Sci USA 94:10397-10402.
Апстракт / БЕСПЛАТНО Целосен текст
- ↵
- Фиенберг АА,
- Хирои Н,
- Мермелштајн П,
- Песна WJ,
- Снајдер ГЛ,
- Ниши А,
- Черами А,
- О'Калаган ЈП,
- Милер Д,
- Кол ДГ,
- и сор.
(1998) Наука 281:838-842.
Апстракт / БЕСПЛАТНО Целосен текст
- ↵
- Хирои Н,
- Фајнберг А,
- Хајле Ц,
- Greengard P,
- Нестлер ЕЈ
(1999) Eur J Neurosci 11:1114-1118.
CrossRef Medline Web of Science
- ↵
- Greengard P,
- Ален ПБ,
- Nairn AC
(1999) Неврон 23:435-447.
CrossRef Medline Web of Science
- ↵
- Биб ЈА,
- Снајдер ГЛ,
- Ниши А,
- Јан Z,
- Мејер Л,
- Фиенберг АА,
- Цаи ЛХ,
- Квон YT,
- Жиро Џеј,
- Черник АЈ,
- и сор.
(1999) Природа (Лондон) 402:669-671.
- ↵
- Чен Ј.С.,
- Келц МБ,
- Зенг GQ,
- Сакаи Н,
- Steffen C,
- Shockett PE,
- Пичото М,
- Думан Р.С.,
- Нестлер ЕЈ
(1998) Мол Фармакол 54:495-503.
Апстракт / БЕСПЛАТНО Целосен текст
- ↵
- Келц МБ,
- Чен Ј.С.,
- Карлезон WA,
- Whisler K,
- Гилден Л,
- Бекман А.М.,
- Steffen C,
- Џанг ИЈ,
- Marotti L,
- Само SW,
- и сор.
(1999) Природа (Лондон) 401:272-276.
- ↵
- Добразански П,
- Ногучи Т,
- Ковари К,
- Рицо Калифорнија,
- Лазо П.С.,
- Браво Р
(1991) Mol Cell Biol 11:5470-5478.
Апстракт / БЕСПЛАТНО Целосен текст
-
- Nakabeppu Y,
- Натанс Д
(1991) Cell 64:751-759.
CrossRef Medline Web of Science
- ↵
- Јен Ј,
- Мудрост РМ,
- Tratner I,
- Верма ИМ
(1991) Proc Natl Acad Sci USA 88:5077-5081.
Апстракт / БЕСПЛАТНО Целосен текст
- ↵
- Бело ФЈ,
- Ху XT,
- Џанг XF,
- Волк ЈАС
(1995) J Pharmacol Exp Ther 273:445-454.
Апстракт / БЕСПЛАТНО Целосен текст
- ↵
- Хајман С.Е
(1996) Неврон 16:901-904.
CrossRef Medline Web of Science
-
- Крик МЈ
(1997) Pharmacol Biochem Behav 57:551-569.
CrossRef Medline Web of Science
- ↵
- Шипенберг ТС,
- Реа В
(1997) Pharmacol Biochem Behav 57:449-455.
CrossRef Medline Web of Science
- ↵
- Чен Ј.С.,
- Џанг ИЈ,
- Келц МБ,
- Steffen C,
- Анг ЕС,
- Zeng L,
- Нестлер ЕЈ
(2000) J Neurosci 20:8965-8971.
Апстракт / БЕСПЛАТНО Целосен текст
- ↵
- Биб ЈА,
- Чен Ј.С.,
- Тејлор Џ.Р.,
- Svenningsson P,
- Ниши А,
- Снајдер ГЛ,
- Јан Z,
- Сагава ЗК,
- Nairn AC,
- Нестлер ЕЈ,
- и сор.
(2001) Природа (Лондон) 410:376-380.
- ↵
- Лушер Ц,
- Никол РА,
- Маленка РЦ,
- Muller D
(2000) Нат Невросци 3:545-550.
CrossRef Medline Web of Science
-
- Малинов Р,
- Мејнен ЗФ,
- Хајаши Ј
(2000) Curr Opin Neurobiol 10:352-357.
CrossRef Medline Web of Science
- ↵
- Scannevin RH,
- Huganir RL
(2000) Nat Rev Neurosci 1:133-141.
CrossRef Medline Web of Science
Robinson, TE & Kolb, B. (1999) (1997) Eur. J. Neurosci. 11, 1598–1604.
- ↵
- Кери М,
- Малиот СВ
(2000) Транскрипциска регулатива кај еукариотите (Cold Spring Harbor Lab. Press, Plainview, NY).
- ↵
- Спенсер ВА,
- Дејви Џ.Р
(1999) Gene 240:1-12.
CrossRef Medline Web of Science
 Facebook
 Twitter
- Google +
 CiteULike
 вкусни
 Digg
 Менделеј
HighWire Прес-домаќин статии цитирајќи овој напис
- Законот за натурални и наркотични награди за заеднички нервни пластични механизми со {Delta} FosB како главен медијатор J. Neurosci. 2013 33 (8) 3434-3442
- Дрога, криминал и епигенетика на хедоничната алостаза Journal of Contemporary Criminal Justice 2012 28 (3) 314-328
- Апстракт
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Апстракт
- Целосен текст (HTML)
- Целосен текст (PDF)
- Морфинот ја активира патеката на транскрипцискиот фактор-1 налик на Е дваесет и шестот/факторот на серумски одговор преку екстрацелуларните сигнално регулирани кинази 1/2 во клетките F11 кои произлегуваат од ганглијаните неврони на грбниот корен J. Pharmacol. Exp. Таму. 2012 342 (1) 41-52
- Молекуларен механизам за порта лек: епигенетски промени иницирани од изразување на главниот ген на никотин од кокаин Sci Transl Med 2011 3 (107) 107ra109
- Засилено само-администрирање на сахароза и кокаин и барање дрога предизвикана од знаци по губење на VGLUT2 кај допаминските неврони на средниот мозок кај глувци J. Neurosci. 2011 31 (35) 12593-12603
- Хроничната интермитентна хипоксија го зголемува крвниот притисок и изразувањето на FosB/{Delta}FosB во централните автономни региони Am. J. Физиол. Регуларно. Интегрирајте. Комп. Физиол. 2011 301 (1) R131-R139
- Отсуството на GPR37/PAEL рецепторот ја нарушува стриаталната фосфорилација на Akt и ERK2, {Delta}FosB експресијата и претпочитањето на условено место на амфетамин и кокаин FASEB J. 2011 25 (6) 2071-2081
- Врската помеѓу времетраењето на почетната изложеност на алкохол и постојаната молекуларна толеранција е значително нелинеарна J. Neurosci. 2011 31 (7) 2436-2446
- In Vivo биолуминисценциската слика открива редокс-регулирана активаторска активација на протеин-1 во паравентрикуларното јадро на глувци со реноваскуларна хипертензија Хипертензија 2011 57 (2) 289-297
- Стриаталната прекумерна експресија на {Delta}FosB репродуцира хронични неволни движења предизвикани од леводопа J. Neurosci. 2010 30 (21) 7335-7343
- Епигенетско посредување на влијанијата врз животната средина кај големите психотични нарушувања Schizophr Bull 2009 35 (6) 1045-1056
- МНР сонди базирани на ДНК за специфична детекција на хронична изложеност на амфетамин во живи мозоци J. Neurosci. 2009 29 (34) 10663-10670
- Променета пластичност на дендритниот 'рбет кај стаорци повлечени од кокаин J. Neurosci. 2009 29 (9) 2876-2884
- Екран со прекумерна експресија кај Drosophila ги идентификува невронските улоги на GSK-3{бета}/бушава како регулатор на развојната пластичност зависна од АП-1 Генетика 2008 180 (4) 2057-2071
- Транскрипција МНР: Нов поглед на живиот мозок Невролог 2008 14 (5) 503-520
- {Делта}Индукцијата на FosB во орбитофронталниот кортекс ја посредува толеранцијата кон когнитивната дисфункција индуцирана од кокаин J. Neurosci. 2007 27 (39) 10497-10507
- Трајна ранливост на враќање на однесувањето кое бара метамфетамин кај мутантните глувци со невротрофичен фактор добиен од глијална клеточна линија FASEB J. 2007 21 (9) 1994-2004
- {Delta} FosB во Нукус Акумбенс го регулира Инструменталното однесување и мотивација засилено со храна J. Neurosci. 2006 26 (36) 9196-9204
- Регулирање на {Delta} FosB стабилност со фосфорилација. J. Neurosci. 2006 26 (19) 5131-5142
- Изразувањето на мутантните NMDA рецептори во клетките што содржат допамин Д1 рецептор ја спречува сензибилизацијата на кокаин и ја намалува склоноста кон кокаин J. Neurosci. 2005 25 (28) 6651-6657
- D1 допаминските рецептори ја модулираат {Delta}FosB индукцијата во стриатум на стаорец по интермитентна администрација на морфин J. Pharmacol. Exp. Таму. 2005 314 (1) 148-154
- Невробиологија на глувците избрани за високо-доброволно движење на тркала Интегрирајте. Комп. Биол. 2005 45 (3) 438-455
- Ефекти од лишување од вода и рехидратација врз боењето на c-Fos и FosB во супраоптичкото јадро на стаорец и регионот на lamina terminalis Am. J. Физиол. Регуларно. Интегрирајте. Комп. Физиол. 2005 288 (1) R311-R321
- Транскрипциска индукција на генот FosB/{Делта}FosB со механички стрес кај остеобластите J Biol Chem 2004 279 (48) 49795-49803
- Индукција на {Delta}FosB во мозочни структури поврзани со награди по хроничен стрес J. Neurosci. 2004 24 (47) 10594-10602
- Дозата на генот Sim1 го модулира одговорот на хомеостатското хранење на зголемените масти во исхраната кај глувците Am. J. Физиол. Ендокринол. Метаб. 2004 287 (1) E105-E113
- Анализа на микросреди на ДНК на генската експресија во астроцитите на главата на човечкиот оптички нерв како одговор на хидростатичкиот притисок Физиол. Геномика 2004 17 (2) 157-169
- Супероксидот е вклучен во активирањето на централниот нервен систем и симпато-ексцитација на срцева слабост предизвикана од миокарден инфаркт заокружи Рез. 2004 94 (3) 402-409
- Аденозин А2А рецептори во невроадаптација на повторена допаминергична стимулација: Импликации за третман на дискинезии кај Паркинсонова болест Неврологија 2003 61 (90116) S74-81
- Цитоплазматска наспроти нуклеарна локализација на протеини поврзани со Фос во жаба, Rana esculenta, тестис: ин виво и директен ин витро ефект на агонист на хормон кој ослободува гонадотропин Биол. Репродуцирај. 2003 68 (3) 954-960
- Периадолесцентните глувци покажуваат засилена регулација на Делта ФосБ како одговор на кокаин и амфетамин J. Neurosci. 2002 22 (21) 9155-9159
- Delta FosB го регулира движењето на тркалата J. Neurosci. 2002 22 (18) 8133-8138
- Активноста на КРЕБ во јадрото на акумбен школка го контролира однесувањето на однесувањето на емоционалните стимули Proc. Натл. акад. Sci. САД 2002 99 (17) 11435-11440
- Психогеномика: Можности за разбирање на зависноста J. Neurosci. 2001 21 (21) 8324-8327