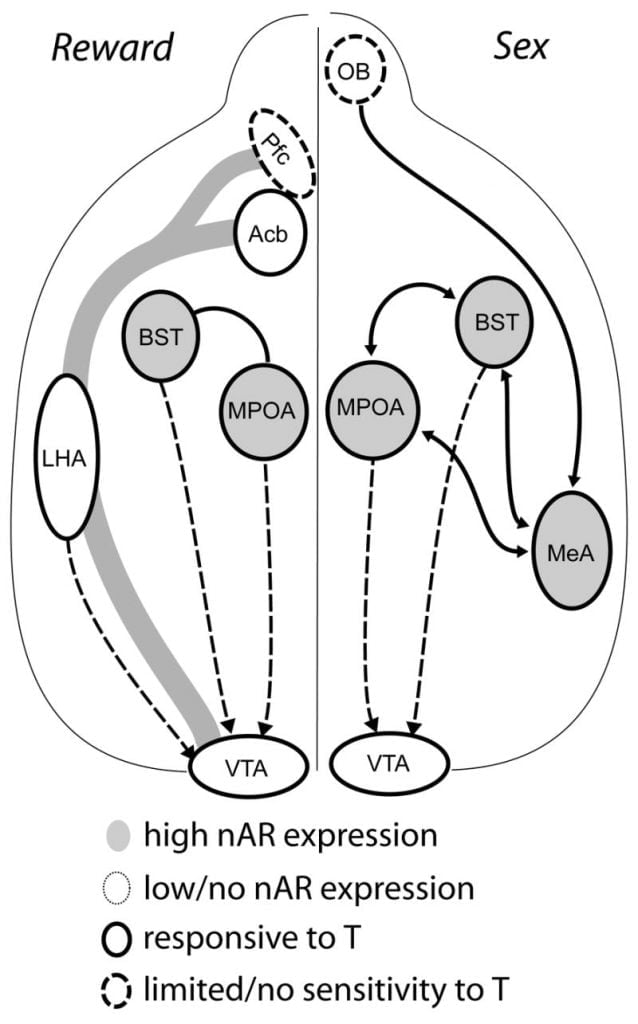
ความคิดเห็น: ความคิดเห็นที่ยอดเยี่ยมของการวิจัยที่เกี่ยวข้องเกือบทั้งหมดในตัวรับแอนโดรเจนโดพามีนและการทำงานทางเพศ การวาดภาพที่ยอดเยี่ยมความสัมพันธ์วงจร hypothalamus- รางวัล
Horm Behav. พฤษภาคม 2008; 53 (5) : 647–658.
เผยแพร่ทางออนไลน์เมื่อวันที่ 13 กุมภาพันธ์ 2008 doi: 10.1016/j.yhbeh.2008.01.010
นามธรรม
วัยรุ่นมีความสัมพันธ์กับการเพิ่มขึ้นของพฤติกรรมการแสวงหาความสุขซึ่งในที่สุดก็มีรูปร่างโดยการเปิดใช้งาน pubertal ของแกน hypothalamo-pituitary-gonadal ในรูปแบบสัตว์ของพฤติกรรมที่ให้ผลตอบแทนตามธรรมชาติเช่นเพศลูกอัณฑะแอนโดรเจนมีส่วนช่วยในการพัฒนาและแสดงออกของพฤติกรรมในเพศชาย เพื่อให้เกิดการเจริญเติบโตของพฤติกรรมสมองได้รับการเปลี่ยนแปลงอย่างมีนัยสำคัญในช่วงวัยรุ่นและการเปลี่ยนแปลงหลายอย่างก็มีความไวเช่นกันกับแอนโดรเจนซึ่งอาจทำหน้าที่ผ่านตัวรับแอนโดรเจน (AR) ด้วยปฏิสัมพันธ์ที่ละเอียดอ่อนของฮอร์โมนอวัยวะสืบพันธุ์และการพัฒนาสมองจึงไม่น่าแปลกใจที่การหยุดชะงักของระดับฮอร์โมนในช่วงเวลาที่อ่อนไหวนี้จะส่งผลต่อพฤติกรรมของวัยรุ่นและผู้ใหญ่ ในแฮมสเตอร์เพศชายจำเป็นต้องมีการสัมผัสกับฮอร์โมนเทสโทสเตอโรนในช่วงวัยรุ่นโดยปกติจะแสดงพฤติกรรมทางเพศของผู้ใหญ่ เพศที่ถูกปราศจากแอนโดรเจนในช่วงวัยแรกรุ่นแสดงการขาดดุลอย่างยั่งยืนในการผสมพันธุ์ ในทางกลับกันแอนโดรเจนเพียงอย่างเดียวไม่เพียงพอที่จะชักนำให้เกิดการผสมพันธุ์ในเพศชายที่เป็น prepubertal แม้ว่า AR ของสมองจะมีอยู่ก่อนวัยแรกรุ่น ในบริบทนี้การใช้สเตียรอยด์ชนิดแอนอะโบลิกและแอนโดรเจน (AAS) ในช่วงวัยรุ่นเป็นปัญหาที่สำคัญ การละเมิดของ AAS มีศักยภาพที่จะเปลี่ยนทั้งจังหวะและระดับของแอนโดรเจนในเพศชายของวัยรุ่น ในแฮมสเตอร์การได้รับ AAS ของวัยรุ่นจะเพิ่มความก้าวร้าวและทำให้เกิดการเปลี่ยนแปลงที่ยั่งยืนในระบบสารสื่อประสาท นอกจากนี้ AAS ยังเป็นตัวเสริมแรงดังที่เห็นได้จากการบริหารตนเองของฮอร์โมนเพศชายและ AAS อื่น ๆ อย่างไรก็ตามหลักฐานล่าสุดแสดงให้เห็นว่าผลเสริมแรงของแอนโดรเจนอาจไม่จำเป็นต้องใช้ AR คลาสสิก ดังนั้นการตรวจสอบการมีปฏิสัมพันธ์ระหว่างแอนโดรเจนต่อไปและพฤติกรรมการให้รางวัลในสมองของวัยรุ่นจึงเป็นสิ่งจำเป็นเพื่อความเข้าใจที่ดีขึ้นเกี่ยวกับการใช้ AAS ในทางที่ผิด
ภาพรวมสินค้า
วัยรุ่นเป็นช่วงที่สมองตื่นตัวต่อทั้งความสุขและความเสี่ยง ในวัยรุ่นมนุษย์ สิ่งนี้มักแสดงออกมาในรูปแบบของการทดลองใช้ยาเสพติดและเพศสัมพันธ์ ในสหรัฐอเมริกา อายุเฉลี่ยของการมีเพศสัมพันธ์ครั้งแรกในผู้ชายคือ 16.4 ปี และ 65% มีเพศสัมพันธ์แล้วก่อนจบชั้นมัธยมศึกษาปีที่ 12 ( Kaiser Family Foundation, 2005 ) ในทำนองเดียวกัน กลุ่มประชากรนี้มีอัตราการใช้ยาเสพติดผิดกฎหมายสูงที่สุดในสหรัฐอเมริกา จากการสำรวจระดับชาติเกี่ยวกับการใช้ยาเสพติดและสุขภาพในปี 2004 พบว่า 38% ของผู้ชายอายุ 18-25 ปี ใช้ยาเสพติดผิดกฎหมายในรอบปีที่ผ่านมา ( SAMHSA/OAS, 2005 ) นอกจากนี้ 31% ของเด็กชายวัยรุ่นใช้ยาเสพติดหรือแอลกอฮอล์ระหว่างการมีเพศสัมพันธ์ครั้งล่าสุด ( Kaiser Family Foundation, 2005 ) ยิ่งไปกว่านั้น วัยรุ่นยังเป็นช่วงเวลาสำคัญในการเกิดโรคทางจิตเวชบางอย่าง เช่น โรคซึมเศร้า โรควิตกกังวล โรคเกี่ยวกับการรับประทานอาหารผิดปกติ และโรคความประพฤติผิดปกติ เราตั้งสมมติฐานว่า การหลั่งฮอร์โมนเพศในช่วงวัยรุ่น การกระตุ้นตัวรับสเตียรอยด์ในสมอง และปฏิสัมพันธ์ระหว่างฮอร์โมนและประสบการณ์ที่มีต่อพัฒนาการของสมองในวัยรุ่น ล้วนมีส่วนทำให้เกิดการเปลี่ยนแปลงทางพฤติกรรมที่พบเห็นได้ในช่วงวัยรุ่น
เป้าหมายของเราในที่นี้คือการตรวจสอบหลักฐานที่อวัยวะสืบพันธุ์แอนโดรเจนเป็นสื่อกลางในการเติบโตของวัยรุ่นและพฤติกรรมผู้ใหญ่ที่มีแรงจูงใจเช่นเดียวกับคุณสมบัติที่คุ้มค่าของพฤติกรรมเหล่านี้ นอกจากนี้เรายังนำเสนอหลักฐานว่าฮอร์โมนเทสโทสเตอโรนนั้นให้ผลตอบแทนซึ่งน่าจะนำไปสู่การเปลี่ยนแปลงในพฤติกรรมของแรงจูงใจในช่วงวัยรุ่นเมื่อระดับเทสโทสเทอโรนพุ่งสูงขึ้น บทความนี้มุ่งเน้นไปที่การศึกษาวงจรประสาทที่เกี่ยวข้องกับพฤติกรรมทางเพศของผู้ชายโดยเฉพาะในหนูแฮมสเตอร์ซีเรียโดยเน้นไปที่การทำงานร่วมกันระหว่างเทสโทสเตอโรนและโดปามีน (DA) เราเสนอให้แอนโดรเจนแบบ pubertal มีผลทั้งชั่วคราวและระยะยาวต่อวงจรรางวัลและพฤติกรรมที่สร้างแรงจูงใจ เราตั้งสมมติฐานเพิ่มเติมว่าการเสริมด้วยแอนโดรเจนภายนอกในรูปแบบของแอนอะโบลิก - แอนโดรเจนและสเตียรอยด์ (AAS) ช่วยเพิ่มอิทธิพลปกติของแอนโดรเจนแอนโดรเจนและทำให้เกิดผลเสียต่อการพัฒนาสมองและพฤติกรรมวัยรุ่น
วัยรุ่นเป็นช่วงเวลาที่อ่อนไหวต่อการพัฒนาสมอง
ในที่สุดสมองเป็นทั้งตัวกระตุ้นและเป้าหมายสำหรับการกระทำของแอนโดรเจนในช่วงวัยรุ่น ในเด็กเล็ก (<12 ปี) และหนูแฮมสเตอร์อายุน้อย (อายุ <28 วัน) การหมุนเวียนของแอนโดรเจนและโกนาโดโทรปินจะอยู่ในระดับพื้นฐาน เมื่อการหลั่งของฮอร์โมนลูทีไนซ์จากต่อมใต้สมองส่วนหน้าเพิ่มขึ้นเพื่อตอบสนองต่อฮอร์โมนที่ปล่อยฮอร์โมนโกนาโดโทรปินในระดับไฮโปทาลามิกความเข้มข้นของฮอร์โมนเทสโทสเตอโรนที่หมุนเวียนจะเพิ่มขึ้นอย่างมีนัยสำคัญ สิ่งนี้เกิดขึ้นโดย Tanner stage II / III (14 ปี) ในเด็กผู้ชายและอายุ 28 วันในหนูแฮมสเตอร์ เมื่อเด็กชายถึง Tanner ระยะ IV / V (แคลิฟอร์เนียอายุ 16 ปี) หรือเมื่อหนูแฮมสเตอร์อายุ 50–60 วันฮอร์โมนเพศชายจากภายนอกจะอยู่ในช่วงตัวผู้ที่โตเต็มวัย การหลั่งฮอร์โมนในวัยแรกรุ่นเกิดขึ้นพร้อมกับช่วงวัยรุ่นซึ่งเกิดขึ้นตั้งแต่อายุประมาณ 12 ถึง 20 ปีในมนุษย์ ฮอร์โมนวัยแรกรุ่นไม่เพียงทำหน้าที่ในเนื้อเยื่อส่วนปลายเพื่อทำให้เกิดลักษณะทางเพศทุติยภูมิซึ่งเป็นสัญญาณที่ชัดเจนของวัยแรกรุ่นเท่านั้น แต่ยังทำหน้าที่เป็นศูนย์กลางในการมีอิทธิพลต่อทั้งการเปลี่ยนแปลงของสมองวัยรุ่นและการเจริญเติบโตทางพฤติกรรม นอกจากนี้การเปลี่ยนแปลงทางสรีรวิทยาและระบบประสาทที่เกิดจากฮอร์โมนวัยแรกรุ่นนำไปสู่การเปลี่ยนแปลงที่สำคัญในประสบการณ์ของแต่ละบุคคลซึ่งสามารถเปลี่ยนแปลงแนวทางการพัฒนาสมองได้อย่างลึกซึ้ง ดังนั้นการเพิ่มขึ้นของฮอร์โมนสเตียรอยด์ทางเพศในวัยแรกรุ่นซึ่งได้รับแรงหนุนจากการเจริญเติบโตตามกำหนดเวลาของการเจริญเติบโตของแกนประสาทระบบสืบพันธุ์จึงทำให้พัฒนาการทางพฤติกรรมของวัยรุ่นมีผลทั้งทางตรงและทางอ้อมต่อระบบประสาท
ในปัจจุบันวัยรุ่นของมนุษย์ได้รับการยอมรับว่าเป็นช่วงเวลาสำคัญของการพัฒนาระบบประสาทในระหว่างที่วงจรพฤติกรรมนั้นได้รับการออกแบบและปรับปรุงใหม่ แม้ว่าสมองของเด็กอายุ 5 อยู่แล้ว 90% ของขนาดผู้ใหญ่แล้ว (เดคาบัน, 1978) ยังคงมีการเปลี่ยนแปลงครั้งใหญ่ แนวคิดนี้เกิดขึ้นจากการวิจัยทั้งในมนุษย์และสัตว์ซึ่งบันทึกไว้ว่ากระบวนการพัฒนาพื้นฐานหลายอย่างที่เกิดขึ้นระหว่างการพัฒนาสมองปริกำเนิดนั้นเกิดขึ้นอีกครั้งในช่วงวัยรุ่น กระบวนการเหล่านี้รวมถึง neurogenesis (Eckenhoff และ Rakic, 1988; เขาและทีมงาน 2007; Pinos, Collado, Rodriguez-Zafra, Rodriguez, Segovia และ Guillamon, 2001; Rankin, Partlow, McCurdy, Giles, และ Fisher, 2003) การตายของเซลล์ที่ตั้งโปรแกรม (Nunez, Lauschke และ Juraska, 2001; Nunez, Sodhi และ Juraska, 2002) การทำรายละเอียดและการตัดแต่งกิ่งของดอกเรนดิคริทและซินเนส (Andersen, Rutstein, Benzo, Hostetter และ Teicher, 1997; Huttenlocher และ Dabholkar, 1997; Lenroot และ Giedd, 2006; Sowell, Thompson, Leonard, Welcome, Kan, และ Toga, 2004) myelination (Benes, Turtle, Khan, และ Farol, 1994; Paus, Collins, Evans, Leonard, Pike และ Zijdenbos, 2001; Sowell, Thompson, Tessner และ Toga, 2001) และความแตกต่างทางเพศ (Chung, De Vries และ Swaab, 2002; Davis, Shryne และ Gorski, 1996; Nunez et al., 2001) ดังนั้นวิถีการพัฒนาของสมองหลังคลอดไม่ได้เป็นเชิงเส้น แต่เป็นลักษณะแทนโดยการระเบิดของการเปลี่ยนแปลงอย่างรวดเร็วของวัยรุ่นและเกี่ยวข้องกับเหตุการณ์ที่เกิดขึ้นทั้งก้าวหน้าและถอยหลัง ตามที่นักชีววิทยาพัฒนาการรู้ช่วงเวลาของการเปลี่ยนแปลงการพัฒนาอย่างรวดเร็วส่งสัญญาณความไวและความอ่อนไหวต่อการเปลี่ยนแปลงที่ขึ้นกับทั้งประสบการณ์และผลที่ไม่พึงประสงค์จากการก่อกวนและดูถูกเหยียดหยามและไม่มีเหตุผลที่จะคิดว่าการพัฒนาสมองของวัยรุ่นAndersen, 2003; หอก 2000) ดังนั้นการรบกวนในช่วงเวลาของฮอร์โมน pubertal ที่มีผลต่อสมองของวัยรุ่นจะถูกทำนายว่าจะมีผลกระทบระยะยาวต่อพฤติกรรมของผู้ใหญ่
แอนโดรเจนและวงจรประสาทสำหรับพฤติกรรมที่กระตุ้น
เนื่องจากวัยรุ่นเป็นช่วงชั่วคราวของการพัฒนาจึงเป็นการยากที่จะประเมินสมองวัยรุ่นและพฤติกรรมในการแยก เพื่อเป็นการชื่นชมกับลักษณะเฉพาะของวัยรุ่นมันจะเป็นประโยชน์ในการเปรียบเทียบกับสมองและพฤติกรรมของผู้ใหญ่ที่เป็นผู้ใหญ่ ดังนั้นด้วยการมุ่งเน้นของบทความนี้เกี่ยวกับพฤติกรรมทางเพศชายและรางวัลมันเป็นสิ่งสำคัญที่นี่เพื่อแนะนำวงจรประสาทสำหรับการมีเพศสัมพันธ์และแรงจูงใจทางเพศในเพศชายผู้ใหญ่รวมถึงบทบาทของฮอร์โมน Gonoid เตียรอยด์ในการกระตุ้นพฤติกรรมและการกระจายของผู้รับแอนโดรเจน (AR) และเอสโตรเจน (ER)
ตัวรับแอนโดรเจน (AR) พบได้ในกลุ่มเซลล์ที่สร้างวงจรประสาทซึ่งทำหน้าที่ควบคุมพฤติกรรมทางสังคมที่ให้รางวัล เช่น เพศสัมพันธ์ นอกจากนี้ AR ในสมองยังแสดงออกก่อนวัยเจริญพันธุ์ในหนูแฮมสเตอร์ และถูกกระตุ้นให้แสดงออกมากขึ้นโดยแอนโดรเจนในหนูแฮมสเตอร์เพศผู้ทั้งวัยเด็กและวัยผู้ใหญ่ ( Kashon, Hayes, Shek, and Sisk, 1995 ; Meek, Romeo, Novak, and Sisk, 1997 ) ในสมองของสัตว์ฟันแทะ พบว่ามีการกระจายตัวของ AR และ ER ที่ทับซ้อนกันอย่างมาก ( Wood and Newman, 1995 ) และอะโรมาเทส ( Celotti, Negri-Cesi, and Poletti, 1997 ) รวมถึงตัวรับเอสโตรเจนทั้งรูปแบบ α และ β ( Shughrue, Lane, and Merchenthaler, 1997 ) เมื่อจับกับลิแกนด์แล้ว AR และ ER แบบ "คลาสสิก" จะทำหน้าที่เป็นปัจจัยการถอดรหัสเพื่อกระตุ้นการถอดรหัสและการสังเคราะห์โปรตีนใหม่ ไม่น่าแปลกใจที่ผลกระทบเหล่านี้เกิดขึ้นอย่างช้าๆ โดยมีการออกฤทธิ์ที่ล่าช้า การกระตุ้นพฤติกรรมทางเพศของหนูแฮมสเตอร์ตัวผู้ด้วยสเตียรอยด์ ( Noble และ Alsum, 1975 ) สอดคล้องกับการออกฤทธิ์ผ่านกลไกทางพันธุกรรมแบบคลาสสิก ตัวอย่างเช่น ต้องใช้เวลา 2 สัปดาห์ในการได้รับสเตียรอยด์เพื่อฟื้นฟูพฤติกรรมการผสมพันธุ์ในหนูที่ถูกตัดอัณฑะเป็นเวลานาน การศึกษาล่าสุดในหนูยังแสดงให้เห็นถึงผลกระทบระดับเซลล์อย่างรวดเร็วของแอนโดรเจนในบริเวณสมองที่มีตัวรับแบบคลาสสิกน้อย ( Mermelstein, Becker และ Surmeier, 1996 ) เชื่อกันว่าการออกฤทธิ์ของสเตียรอยด์เหล่านี้เกิดจากการทำงานของตัวรับที่ไม่ใช่ทางพันธุกรรม ในขณะที่การกระจายตัวของ AR และ ER แบบคลาสสิกในสมองของหนูแฮมสเตอร์ค่อนข้างจำกัด ( Wood และ Swann, 1999 ) เป้าหมายในสมองที่เป็นไปได้สำหรับการออกฤทธิ์ของแอนโดรเจนที่ไม่ใช่ทางพันธุกรรมนั้นกว้างกว่ามาก
บริเวณพรีออปติกส่วนกลาง (MPOA) มีบทบาทสำคัญในการผสมพันธุ์ในเพศผู้ ตั้งแต่ปลาทองไปจนถึงมนุษย์ (ดูในHull, Wood, และ McKenna, 2006 ) ยิ่งไปกว่านั้น MPOA ในหนูแฮมสเตอร์ยังทำหน้าที่ส่งผ่านฮอร์โมนสเตียรอยด์จากต่อมเพศผ่านทาง AR และ ER ที่มีอยู่มากมาย และการปลูกถ่ายเทสโทสเตอโรนใน MPOA ก็เพียงพอที่จะฟื้นฟูการทำงานทางเพศในหนูที่ถูกตัดอัณฑะเป็นเวลานาน ( Wood และ Swann, 1999 ) ในหนูตัวผู้ สเตียรอยด์จากต่อมเพศจะออกฤทธิ์ใน MPOA เพื่อควบคุมการปล่อย DA ในสภาวะปกติ ( Putnam, Sato, และ Hull, 2003 ) และกระตุ้นการผสมพันธุ์ ( Hull, Du, Lorrain, และ Matuszewich, 1995 ) ในขั้นต้น จะมีการเพิ่มขึ้นของ DA เล็กน้อยเมื่อมีตัวเมียปรากฏอยู่หลังฉากกั้น ระหว่างการผสมพันธุ์ ระดับ DA ใน MPOA จะเพิ่มขึ้นอีก (+50% ของระดับพื้นฐาน) และผลกระทบนี้ต้องอาศัยแอนโดรเจน ( Hull et al., 1995 ; Putnam et al., 2003 ) ไม่น่าแปลกใจที่ในตัวผู้ที่ถูกตอนแล้วไม่ผสมพันธุ์ ระดับ DA ใน MPOA จะไม่เพิ่มขึ้น ( Hull et al., 1995 ) การตีความผลลัพธ์นี้ค่อนข้างยาก เนื่องจากความไม่มีการหลั่ง DA นั้นถูกรบกวนจากการไม่มีกิจกรรมทางเพศ อย่างไรก็ตาม การหลั่ง DA ใน MPOA มีความสัมพันธ์กับการสูญเสียการผสมพันธุ์ในตัวผู้ที่ถูกตอนในระยะสั้น ( Hull et al., 1995 ) และกับการฟื้นฟูกิจกรรมทางเพศที่เกิดจากเทสโทสเตอโรนในตัวผู้ที่ถูกตอนในระยะยาว ( Du, Lorrain, and Hull, 1998 ; Putnam, Du, Sato, and Hull, 2001 )
ในบริเวณ MPOA ของสัตว์ฟันแทะ เมตาโบไลต์แอนโดรเจนและเอสโตรเจนของเทสโทสเตอโรนมีบทบาทเฉพาะในการควบคุมการผสมพันธุ์ ( Putnam et al., 2003 ; Putnam, Sato, Riolo, and Hull, 2005 ) ระยะเวลาในการเริ่มต้นการผสมพันธุ์ (การขึ้นคร่อมหรือการสอดใส่) เป็นตัววัดแรงจูงใจทางเพศอย่างหนึ่ง ระยะเวลาในการเริ่มต้นกิจกรรมทางเพศมีความไวต่อเอสโตรเจน ผ่านการรักษาระดับไนตริกออกไซด์ซินเทสใน MPOA ซึ่งจะรักษาระดับโดปามีน (DA) พื้นฐานไว้ สัตว์ที่ถูกตัดอัณฑะและได้รับการรักษาด้วยเอสโตรเจนแสดงระดับโดปามีนพื้นฐานสูง ซึ่งมีความสัมพันธ์อย่างมากกับความสามารถในการเริ่มต้นการผสมพันธุ์ อย่างไรก็ตาม พวกมันไม่แสดงการเพิ่มขึ้นของการปล่อยโดปามีนที่เกิดจากตัวเมียและการผสมพันธุ์ ซึ่งมีความสัมพันธ์อย่างมากกับสมรรถภาพทางเพศ ดังนั้น สมรรถภาพทางเพศของพวกมันจึงต่ำกว่าระดับของสัตว์ที่ยังไม่ถูกตัดอัณฑะ ในทางกลับกัน สัตว์ที่ถูกตอนและได้รับการรักษาด้วยแอนโดรเจนที่ไม่สามารถเปลี่ยนเป็นเอสโตรเจนได้เพียงอย่างเดียว จะไม่แสดงระดับโดปามีน (DA) พื้นฐานที่สูงขึ้น และจะไม่สามารถเริ่มการผสมพันธุ์ได้ ดังนั้น เพื่อให้มีสมรรถภาพทางเพศตามปกติ จึงจำเป็นต้องมีทั้งเอสโตรเจนและแอนโดรเจน สมรรถภาพทางเพศมักแสดงออกโดยการวัดความถี่ของการขึ้นคร่อม การสอดใส่ และการหลั่งน้ำอสุจิ เฉพาะเมื่อมีการทดแทนทั้งเอสโตรเจนและแอนโดรเจนเท่านั้น สัตว์เพศผู้ที่ถูกตอนจึงจะแสดงระดับโดปามีน (DA) ที่สูงขึ้น (และระยะเวลาแฝงที่สั้นลง) และการเพิ่มขึ้นของโดปามีนที่เกิดจากตัวเมียและการผสมพันธุ์ (และความถี่ที่เพิ่มขึ้น) ด้วยวิธีนี้ เอสโตรเจนใน MPOA จึงมีส่วนช่วยในการกระตุ้นทางเพศ และทั้งเอสโตรเจนและแอนโดรเจนมีส่วนช่วยในการมีสมรรถภาพทางเพศ
แม้ว่าเทสโทสเตอโรนจะมีความจำเป็นต่อการปลดปล่อย DA ใน MPOA ระหว่างพฤติกรรมการผสมพันธุ์ของตัวผู้และการผสมพันธุ์เอง แต่เทสโทสเตอโรนหรือการผสมพันธุ์เพียงอย่างเดียวไม่สามารถกระตุ้นการปลดปล่อย DA ใน MPOA ได้ แต่จำเป็นต้องมีสัญญาณทางเคมีจากตัวเมียสายพันธุ์เดียวกันเพื่อกระตุ้นการปลดปล่อย DA ใน MPOA ในสัตว์ฟันแทะ สัญญาณทางเคมีเป็นรูปแบบการรับรู้หลักในการเริ่มต้นพฤติกรรมทางเพศของตัวผู้ ( รูปที่ 1 ) สัญญาณทางเคมีถูกส่งจากหลอดรับกลิ่นไปยัง MPOA ผ่านนิวเคลียสอะมิกดาลอยด์ส่วนกลางและนิวเคลียสของเส้นประสาทเทอร์มินาลิส ซึ่งเป็นโครงสร้างที่มี AR และ ER จำนวนมาก ( Wood และ Swann, 1999 ) เพื่อตรวจสอบบทบาทของสัญญาณทางเคมีในการปลดปล่อย DA ที่เกิดจากการผสมพันธุ์ เราจึงวัด DA ใน MPOA ระหว่างการผสมพันธุ์ในแฮมสเตอร์ตัวผู้ที่มีอวัยวะสืบพันธุ์ครบถ้วนแต่ถูกตัดหลอดรับกลิ่นข้างเดียว (UBx, Triemstra, Nagatani และ Wood, 2005 ) แม้ว่าการตัดเอาปุ่มรับกลิ่นทั้งสองข้างออกจะทำให้กิจกรรมทางเพศและการปล่อยโดปามีน (DA) ใน MPOA หายไป แต่การตัดปุ่มรับกลิ่นเพียงข้างเดียวจะไม่รบกวนการผสมพันธุ์ ในการศึกษานี้ การผสมพันธุ์กระตุ้นการปล่อยโดปามีนใน MPOA เมื่อวัดในซีกสมองตรงข้ามกับปุ่มรับกลิ่นที่ถูกทำลาย แต่ไม่พบในซีกสมองด้านเดียวกัน ( รูปที่ 2 ) พบผลลัพธ์ที่คล้ายกันในหนูตัวผู้ที่มีรอยโรคในอะมิกดาลาส่วนกลาง ( Dominguez, Riolo, Xu และ Hull, 2001 ) ในการศึกษาที่เกี่ยวข้อง การกระตุ้นทางเคมีของอะมิกดาลาส่วนกลางในหนูทำให้เกิดการปล่อยโดปามีนใน MPOA เทียบเท่ากับที่เกิดขึ้นระหว่างการผสมพันธุ์ ( Dominguez และ Hull, 2001 ) โดยรวมแล้ว ข้อมูลเหล่านี้ชี้ให้เห็นว่าเทสโทสเตอโรนสร้างสภาพแวดล้อมที่เอื้ออำนวยให้สิ่งเร้าทางประสาทสัมผัสภายนอกเข้าถึง MPOA และกระตุ้นการปล่อยโดปามีนระหว่างการผสมพันธุ์

มะเดื่อ. 2
โดยสรุปแล้ว พฤติกรรมทางเพศและรางวัลตามธรรมชาติอื่นๆ จะกระตุ้นเส้นทางรางวัลทางประสาท วงจรโดปามีน (DA) ในระบบเมโซคอร์ติโคลิมบิกประกอบด้วยบริเวณเท็กเมนทัลด้านล่าง (VTA) นิวเคลียสแอคคัมเบนส์ (Acb) และคอร์เทกซ์ส่วนหน้า (Pfc) เซลล์ประสาทโดปามีนที่อยู่ใน VTA จะส่งสัญญาณไปยัง Acb และ Pfc ทางด้านหน้า ( Koob และ Nestler, 1997 ) ในหนู โดปามีนจะถูกปล่อยออกมาใน Acb ระหว่างการมีเพศสัมพันธ์ ( Pfaus, Damsma, Nomikos, Wenkstern, Blaha, Phillips และ Fibiger, 1990 ) ยาเสพติดหลายชนิดยังออกฤทธิ์ในระบบโดปามีนเมโซลิมบิกเพื่อเพิ่มการปล่อยโดปามีน (แอมเฟตามีน) หรือยับยั้งการดูดซึมโดปามีนกลับ (โคเคน, Di Chiara และ Imperato, 1988 ) ซึ่งเป็นการเสริมคุณสมบัติการเสพติดของยาเหล่านั้น ด้วยวิธีนี้ เทสโทสเตอโรนจึงมีศักยภาพที่จะส่งผลต่อการปล่อย DA ใน Acb ทั้งโดยการกระตุ้นพฤติกรรมทางเพศ และโดยการออกฤทธิ์ในฐานะยาเสพติด (ดูด้านล่าง)
หลักฐานปัจจุบันชี้ให้เห็นว่าระบบโดปามีนเมโซคอร์ติโคลิมบิกเจริญเติบโตเต็มที่ในช่วงวัยรุ่น ความหนาแน่นของเส้นใยโดปามีนใน Acb เพิ่มขึ้นอย่างมากในช่วงวัยรุ่นในหนูเจอร์บิล ซึ่งบ่งชี้ว่าการเจริญเติบโตอย่างมีนัยสำคัญของการฉายภาพโดปามีนจาก VTA ไปยัง Acb เกิดขึ้นในช่วงวัยรุ่น ( Lesting, Neddens, and Teuchert-Noodt, 2005 ) นอกจากนี้ การป้อนข้อมูลโดปามีนไปยังเซลล์ GABA (กรดแกมมาอะมิโนบิวทิริก) ในคอร์เทกซ์ส่วนหน้าด้านในของหนูได้รับการเสริมและปรับเปลี่ยนโดยระบบเซโรโทนินในระหว่างการพัฒนาเข้าสู่วัยเจริญพันธุ์ ( Benes, Taylor, and Cunningham, 2000 ) และการจัดการแอนโดรเจนในหนูโตเต็มวัยนำไปสู่การเปลี่ยนแปลงความหนาแน่นของแอกซอนโดปามีนภายในคอร์เทกซ์ส่วนหน้า ( Kritzer, 2003 ) บริเวณ Pfc, Acb และ VTA มี AR หรือ ER น้อยมาก แม้ว่าจะมี ERβ อยู่ใน VTA ก็ตาม ( Shughrue et al., 1997 ) ดังนั้น จึงดูเหมือนว่าแอนโดรเจนส่งผลต่อระบบโดปามีน mesocorticolimbic ผ่านทางเส้นใยประสาทที่ไวต่อแอนโดรเจน หรือผ่านทาง ERβ ใน VTA เช่นเดียวกับในไฮโปทาลามัส (Handa et al., ในฉบับนี้) ข้อมูลของเราแสดงให้เห็นว่าเซลล์ที่ไวต่อแอนโดรเจนในแฮมสเตอร์ตัวผู้ส่งเส้นใยประสาทไปยัง VTA จากโครงสร้างที่เกี่ยวข้องกับพฤติกรรมที่ไวต่อสเตียรอยด์ ตัวอย่างเช่น ทั้ง MPOA และ bed nucleus of stria terminalis (BST) มีเซลล์ AR-positive จำนวนมากที่ส่งเส้นใยประสาทไปยัง VTA ( Sato and Wood, 2006 ) ventral pallidum ซึ่งเป็นเป้าหมายหลักของเส้นใยประสาทส่งออกของ Acb ( Zahm and Heimer, 1990 ) ก็มีเซลล์ AR-positive จำนวนมากที่ส่งเส้นใยประสาทไปยัง VTA เช่นกัน การคาดการณ์เหล่านี้เปิดโอกาสให้แอนโดรเจนสามารถปรับเปลี่ยนการทำงานของระบบโดปามีนในบริเวณเมโซคอร์ติโคลิมบิกได้
องค์กรที่ขึ้นอยู่กับพฤติกรรมของเตียรอยด์ในช่วงวัยรุ่น
มุมมองดั้งเดิมเกี่ยวกับการออกฤทธิ์ของฮอร์โมนต่อพฤติกรรมของวัยรุ่นนั้นอิงอยู่กับผลการกระตุ้นของฮอร์โมนสเตียรอยด์ ซึ่งหมายถึงความสามารถของสเตียรอยด์ในการอำนวยความสะดวกต่อพฤติกรรมในบริบททางสังคมเฉพาะ โดยการออกฤทธิ์ภายในเซลล์เป้าหมายในวงจรประสาทที่อยู่เบื้องหลังพฤติกรรม ผลการกระตุ้นนั้นเป็นเพียงชั่วคราวในแง่ที่ว่ามันเกิดขึ้นและหายไปตามการมีอยู่และการไม่มีอยู่ของฮอร์โมน และโดยทั่วไปแล้วจะเกี่ยวข้องกับการแสดงออกของพฤติกรรมในวัยผู้ใหญ่ ในทางตรงกันข้าม ผลการจัดโครงสร้างหมายถึงความสามารถของสเตียรอยด์ในการปรับโครงสร้างของระบบประสาทในระหว่างการพัฒนา การจัดโครงสร้างนั้นถาวร คงอยู่ต่อไปหลังจากช่วงเวลาที่ได้รับฮอร์โมน และกำหนดการตอบสนองทางประสาทและพฤติกรรมต่อสเตียรอยด์ในวัยผู้ใหญ่ ความเข้าใจของเราเกี่ยวกับความสัมพันธ์เชิงพัฒนาการระหว่างผลการจัดโครงสร้างและผลการกระตุ้นของฮอร์โมนสเตียรอยด์ได้พัฒนาขึ้นในช่วง 50 ปีที่ผ่านมา ฟีนิกซ์และเพื่อนร่วมงานได้เสนอเป็นครั้งแรกว่าการตอบสนองทางพฤติกรรม (การกระตุ้น) ในวัยผู้ใหญ่ต่อฮอร์โมนสเตียรอยด์นั้นถูกโปรแกรม (จัดโครงสร้าง) โดยฮอร์โมนสเตียรอยด์ในช่วงเวลาที่ไวต่อการเปลี่ยนแปลงมากที่สุดของการพัฒนาในระยะก่อนและหลังคลอด ( Phoenix, Goy, Gerall, and Young, 1959 ) ต่อมา สก็อตต์และเพื่อนร่วมงานได้วางรากฐานทางทฤษฎีสำหรับการมีอยู่ของช่วงเวลาที่ไวต่อการเปลี่ยนแปลงหลายช่วงสำหรับการจัดระเบียบระบบประสาทอย่างต่อเนื่อง และตั้งข้อสังเกตว่าช่วงเวลาที่ไวต่อการเปลี่ยนแปลงมักจะเกิดขึ้นในช่วงที่มีการเปลี่ยนแปลงพัฒนาการอย่างรวดเร็ว (1974) ต่อมา อาร์โนลด์และบรีดเลิฟชี้ให้เห็นว่าการจัดระเบียบสมองที่ขึ้นอยู่กับสเตียรอยด์สามารถเกิดขึ้นได้นอกช่วงเวลาที่ไวต่อการเปลี่ยนแปลงของพัฒนาการ ( อาร์โนลด์และบรีดเลิฟ, 1985 ) ในช่วง 15 ปีที่ผ่านมา งานวิจัยที่ใช้แบบจำลองสัตว์และระบบพฤติกรรมที่หลากหลายทำให้เห็นได้อย่างชัดเจนว่าสมองของวัยรุ่นมีความไวต่อทั้งผลกระทบด้านการกระตุ้นและการจัดระเบียบของสเตียรอยด์จากต่อมเพศ (ดูในซิสก์และเซห์ร, 2005 ) และเช่นเดียวกับช่วงเวลาอื่นๆ ของการเปลี่ยนแปลงพัฒนาการอย่างรวดเร็ว วัยรุ่นเป็นช่วงเวลาแห่งโอกาสที่ชัดเจนสำหรับการปรับโครงสร้างสมองที่ขึ้นอยู่กับสเตียรอยด์
งานวิจัยของเราโดยใช้หนูแฮมสเตอร์เป็นแบบจำลองสัตว์ให้หลักฐานว่าพฤติกรรมทางสังคมของเพศผู้ถูกปรับเปลี่ยนโดยสเตียรอยด์ในช่วงวัยรุ่น ( Schulz, Menard, Smith, Albers, and Sisk, 2006 ; Schulz and Sisk, 2006 ) ก่อนวัยแร้ง การรักษาด้วยเทสโทสเตอโรนไม่สามารถกระตุ้นพฤติกรรมทางเพศในหนูแฮมสเตอร์ได้ ซึ่งบ่งชี้ว่ากระบวนการเจริญเติบโตที่ทำให้วงจรประสาทไวต่อการกระตุ้นหรือการจัดระเบียบโดยฮอร์โมนสเตียรอยด์ยังไม่เกิดขึ้น ( Meek et al., 1997 ; Romeo, Richardson, and Sisk, 2002a ) ในทางกลับกัน ในขณะที่การแสดงออกอย่างชัดเจนของพฤติกรรมสืบพันธุ์ของเพศผู้ในวัยผู้ใหญ่ไม่จำเป็นต้องมีสเตียรอยด์จากต่อมเพศในช่วงวัยรุ่น แต่การแสดงออกสูงสุดของพฤติกรรมนั้นจำเป็นต้องมีสเตียรอยด์ดังกล่าว เมื่อเปรียบเทียบพฤติกรรมสืบพันธุ์ของเพศชายที่ถูกตอนก่อนวัยเจริญพันธุ์ (NoT@P) หรือหลังวัยเจริญพันธุ์ (T@P) แล้วได้รับการรักษาด้วยฮอร์โมนเทสโทสเตอโรนในวัยผู้ใหญ่ พบว่าเพศชายที่ถูกตอนก่อนวัยเจริญพันธุ์แบบ NoT@P มีพฤติกรรมสืบพันธุ์ลดลงอย่างน้อย 50% เมื่อเทียบกับเพศชายที่ถูกตอนหลังวัยรุ่น ( รูปที่ 3 , Schulz, Richardson, Zehr, Osetek, Menard และ Sisk, 2004 ) ยิ่งไปกว่านั้น ความบกพร่องในพฤติกรรมสืบพันธุ์นี้คงอยู่ยาวนาน และไม่สามารถเอาชนะได้ด้วยการรักษาด้วยฮอร์โมนเทสโทสเตอโรนเป็นเวลานานหรือด้วยประสบการณ์ทางเพศในวัยผู้ใหญ่ ( Schulz et al., 2004 ) ในทำนองเดียวกัน หลังจากได้รับการรักษาด้วยเอสโตรเจนและโปรเจสเตอโรนแล้ว เพศผู้ NoT@P จะแสดงอาการลอร์ดโดซิสในระยะเริ่มต้นที่สั้นกว่าและระยะเวลาการลอร์ดโดซิสที่ยาวนานกว่าเพศผู้ที่ถูกตอนเมื่อโตเต็มวัย ( Schulz et al., 2004 ) ซึ่งบ่งชี้ว่าเพศผู้ที่ถูกตอนก่อนวัยเจริญพันธุ์มีลักษณะความเป็นหญิงน้อยกว่าเพศผู้ที่ได้รับเทสโทสเตอโรนในช่วงวัยเจริญพันธุ์

มะเดื่อ. 3
อาจเป็นไปได้ว่าตัวผู้ NoT@P มีแรงจูงใจทางเพศลดลง วิธีหนึ่งในการหาคำตอบของคำถามนี้คือการเปรียบเทียบระยะเวลาในการเริ่มสำรวจอวัยวะเพศและทวารหนัก (AGI) และการขึ้นคร่อมระหว่างตัวผู้ที่ได้รับการผ่าตัดเอาอวัยวะสืบพันธุ์ออกก่อน (NoT@P) และหลังวัยเจริญพันธุ์ (T@P) หากแรงจูงใจทางเพศขึ้นอยู่กับการได้รับฮอร์โมนจากอวัยวะสืบพันธุ์ในช่วงวัยรุ่น เราจะคาดการณ์ได้ว่าตัวผู้ NoT@P จะมีระยะเวลานานกว่าในการเริ่มพฤติกรรมทางเพศ และจากการทดลองพบว่า เมื่อสัมผัสกับตัวเมียที่เป็นสัดซ้ำๆ ตัวผู้ NoT@P ใช้เวลานานขึ้นในการเริ่ม AGI และการขึ้นคร่อมเมื่อเทียบกับตัวผู้ T@P ( รูปที่ 4 ) ดังนั้น นอกจากการจัดระเบียบด้านต่างๆ ของการแสดงออกทางเพศแล้ว ดูเหมือนว่าฮอร์โมนในช่วงวัยเจริญพันธุ์ยังจัดระเบียบด้านที่ให้รางวัลแก่พฤติกรรมทางเพศด้วย เพื่อสนับสนุนความเป็นไปได้นี้ การให้ยาอะโพมอร์ฟีนซึ่งเป็นสารกระตุ้นตัวรับโดปามีนทางส่วนกลางในวัยผู้ใหญ่ จะช่วยฟื้นฟูพฤติกรรมการผสมพันธุ์ของตัวผู้ NoT@P ให้กลับสู่ระดับปกติในวัยผู้ใหญ่ ซึ่งบ่งชี้ว่าฮอร์โมนเทสโทสเตอโรนในช่วงวัยรุ่นจะจัดระเบียบวงจรประสาทโดปามีนตามปกติ (Salas-Ramirez, Montalto, and Sisk, 2006) อย่างไรก็ตาม ยังคงมีคำถามที่น่าสนใจอีกมากมาย ตัวผู้ NoT@P จะกดคันเบ็ดเพื่อเข้าหาตัวเมียที่อยู่ในช่วงติดสัด หรือจะพัฒนาความชอบสถานที่ผสมพันธุ์แบบมีเงื่อนไขหรือไม่ การวิจัยในอนาคตจะสำรวจบทบาทของฮอร์โมนในช่วงวัยรุ่นในการจัดระเบียบแรงจูงใจทางเพศและสมรรถภาพทางเพศ

มะเดื่อ. 4
ระยะเวลาและความเร็วในการสำรวจอวัยวะเพศและทวารหนัก (AGI) ของหนูแฮมสเตอร์เพศผู้ที่ถูกตัดอัณฑะก่อนวัยเจริญพันธุ์ (NoT@P) หรือหลังวัยเจริญพันธุ์ (T@P) หนูแฮมสเตอร์เพศผู้ทุกตัวได้รับการกระตุ้นด้วยเทสโทสเตอโรนในวัยผู้ใหญ่ 7 สัปดาห์หลังจากตัดอัณฑะ และหนึ่งสัปดาห์ก่อนการทดสอบพฤติกรรมครั้งแรก A. หนูแฮมสเตอร์เพศผู้ T@P แสดงความเร็วในการสำรวจอวัยวะเพศและทวารหนักที่คล้ายคลึงกันในการทดสอบทั้งสามครั้งกับหนูแฮมสเตอร์เพศเมียที่อยู่ในช่วงเป็นสัด ในขณะที่หนูแฮมสเตอร์เพศผู้ NoT@P มีความเร็วในการสำรวจอวัยวะเพศและทวารหนักเพิ่มขึ้นในการทดสอบครั้งที่สามกับหนูแฮมสเตอร์เพศเมียที่อยู่ในช่วงเป็นสัด B. หนูแฮมสเตอร์เพศผู้ T@P มีความเร็วในการขึ้นคร่อมลดลงในการทดสอบพฤติกรรมทั้งสามครั้งกับหนูแฮมสเตอร์เพศเมียที่อยู่ในช่วงเป็นสัด ในขณะที่หนูแฮมสเตอร์เพศผู้ NoT@P ไม่แสดงการเปลี่ยนแปลงในความเร็วในการขึ้นคร่อมในการทดสอบพฤติกรรมทั้งสามครั้ง ข้อมูลเหล่านี้ชี้ให้เห็นว่าฮอร์โมนจากอัณฑะในช่วงวัยเจริญพันธุ์มีผลส่งเสริมอย่างยั่งยืนต่อแรงจูงใจของหนูแฮมสเตอร์เพศผู้ที่โตเต็มวัยในการมีพฤติกรรมทางเพศกับหนูแฮมสเตอร์เพศเมีย (ข้อมูลที่ยังไม่ได้ตีพิมพ์จากสัตว์ทดลองในSchulz, KM, Richardson, HN, Zehr, JL, Osetek, AJ, Menard, TA และ Sisk, CL, 2004 )
การตอบสนองต่อพฤติกรรมของเตียรอยด์ที่เตรียมไว้ล่วงหน้า
หนึ่งในปริศนาที่ยังคงอยู่เกี่ยวกับการพัฒนาพฤติกรรมของวัยรุ่นคือ เหตุใดการกระตุ้นพฤติกรรมสืบพันธุ์เพื่อตอบสนองต่อการได้รับสเตียรอยด์จึงลดลงในหนูแฮมสเตอร์เพศผู้ก่อนวัยเจริญพันธุ์ หากระดับแอนโดรเจนที่ต่ำก่อนวัยเจริญพันธุ์จำกัดการแสดงออกของพฤติกรรมทางเพศของเพศชายในหนูแฮมสเตอร์เพศผู้ก่อนวัยเจริญพันธุ์ การเสริมแอนโดรเจนภายในร่างกายในหนูแฮมสเตอร์เพศผู้ก่อนวัยเจริญพันธุ์จึงควรกระตุ้นให้เกิดการผสมพันธุ์ แต่ปรากฏว่าไม่ใช่เช่นนั้น ( Meek et al., 1997 ; Romeo, Cook-Wiens, Richardson, and Sisk, 2001 ; Romeo, Wagner, Jansen, Diedrich, and Sisk, 2002b ) แม้ว่าจำนวนและการกระจายตัวของ AR และ ER ตลอดวงจรการผสมพันธุ์จะคล้ายคลึงกันในสัตว์เพศผู้ที่ได้รับฮอร์โมนก่อนวัยเจริญพันธุ์และสัตว์เพศผู้ที่ถูกตอนแล้ว ( Meek et al., 1997 ; Romeo, Diedrich, and Sisk, 1999 ; Romeo et al., 2002a ) ดังนั้น จึงดูเหมือนว่าแอนโดรเจนและ AR มีความจำเป็นแต่ไม่เพียงพอสำหรับการแสดงออกของพฤติกรรมทางเพศของเพศผู้
ความพยายามในการระบุปัจจัยที่จำกัดกิจกรรมทางเพศก่อนวัยเจริญพันธุ์นั้นยังไม่ประสบผลสำเร็จเท่าที่ควร การตอบสนองของ Fos ต่อสัญญาณทางเคมีจากตัวเมียที่อยู่ในช่วงเป็นสัดนั้นคล้ายคลึงกันในหนูแฮมสเตอร์ตัวผู้ก่อนวัยเจริญพันธุ์และตัวผู้ที่โตเต็มวัย ( Romeo, Parfitt, Richardson, and Sisk, 1998 ) ข้อมูลเหล่านี้แสดงให้เห็นว่ากลไกการแปลงสัญญาณทางประสาทสัมผัสมีความสมบูรณ์ก่อนวัยเจริญพันธุ์ ดังนั้น หนูแฮมสเตอร์ตัวผู้ที่ยังไม่โตเต็มวัยจึงสามารถตรวจจับสัญญาณทางเคมีจากตัวเมียได้ สิ่งที่แตกต่างจากตัวที่โตเต็มวัยคือวิธีการตอบสนองต่อสัญญาณเหล่านั้น คำอธิบายที่เป็นไปได้ประการหนึ่งคือ หนูแฮมสเตอร์ตัวผู้ก่อนวัยเจริญพันธุ์ไม่มีแรงจูงใจที่จะมีพฤติกรรมทางเพศ เราพบว่าหนูแฮมสเตอร์เพศผู้ที่ยังไม่เข้าสู่วัยเจริญพันธุ์ไม่แสดงการตอบสนองของสารโดปามีนในบริเวณ MPOA เพิ่มขึ้นเมื่อสัมผัสกับฟีโรโมนเพศเมีย ในขณะที่หนูแฮมสเตอร์เพศผู้ที่โตเต็มวัยและยังไม่เคยมีเพศสัมพันธ์แสดงการตอบสนองของสารโดปามีนในบริเวณ MPOA อย่างชัดเจนต่อสิ่งเร้าเดียวกัน ( รูปที่ 5 , Schulz, Richardson, Romeo, Morris, Lookingland, and Sisk, 2003 ) ในทำนองเดียวกัน หนูแฮมสเตอร์เพศผู้ที่ยังไม่เข้าสู่วัยเจริญพันธุ์ไม่แสดงการเพิ่มขึ้นของฮอร์โมนเทสโทสเตอโรนในกระแสเลือดตามปกติของหนูโตเต็มวัยหลังจากได้รับฟีโรโมนเพศเมีย ( Parfitt, Thompson, Richardson, Romeo, and Sisk, 1999 ) ดังนั้น ฟีโรโมนเพศเมียจึงดูเหมือนจะเป็นสิ่งเร้าที่ไม่ต้องอาศัยเงื่อนไขสำหรับการตอบสนองทางเคมีประสาทและต่อมไร้ท่อในหนูเพศผู้ที่โตเต็มวัย แต่ไม่ใช่ในหนูเพศผู้ที่ยังไม่เข้าสู่วัยเจริญพันธุ์ ซึ่งบ่งชี้ว่าความสำคัญของสิ่งเร้าทางประสาทสัมผัสที่เกี่ยวข้องกับสังคมเหล่านี้เปลี่ยนแปลงไปตามพัฒนาการของวัยเจริญพันธุ์ อาจเกี่ยวข้องกับการได้รับคุณสมบัติที่ให้รางวัลและแรงจูงใจทางเพศ นอกจากนี้ แม้ว่าเทสโทสเตอโรนจะช่วยกระตุ้นการตอบสนองทางเพศ (AGI) ของเพศเมียในเพศผู้ก่อนวัยเจริญพันธุ์ แต่ผลกระทบนี้ขึ้นอยู่กับว่าเพศผู้นั้นเคยมีประสบการณ์กับเพศเมียที่อยู่ในช่วงเป็นสัดมาก่อนหรือไม่ ที่น่าประหลาดใจคือ การรักษาด้วยเทสโทสเตอโรนจะลดระยะเวลาแฝงและเพิ่มระยะเวลาของการตอบสนองทางเพศ (AGI) เฉพาะในเพศผู้ก่อนวัยเจริญพันธุ์ที่ยังไม่เคยมีประสบการณ์ทางเพศมาก่อนเท่านั้น ( รูปที่ 6 ) ยิ่งไปกว่านั้น เพศผู้ก่อนวัยเจริญพันธุ์ที่เคยมีประสบการณ์กับเพศเมียมาก่อนหนึ่งครั้ง จะแสดงระยะเวลาแฝงของการตอบสนองทางเพศ (AGI) ที่ยาวนานกว่าและระยะเวลาของการตอบสนองทางเพศ (AGI) ที่สั้นกว่าเพศผู้ที่ปฏิสัมพันธ์กับเพศเมียที่พร้อมผสมพันธุ์เป็นครั้งแรก ( รูปที่ 6 ) ข้อมูลเหล่านี้ชี้ให้เห็นว่าการปฏิสัมพันธ์กับเพศเมียที่อยู่ในช่วงเป็นสัดนั้นเป็นสิ่งที่ไม่พึงประสงค์มากกว่าเป็นสิ่งที่ให้รางวัลก่อนวัยเจริญพันธุ์ ดังนั้นจึงขจัดผลกระทบเชิงบวกใดๆ ของเทสโทสเตอโรนต่อการตอบสนองทางเพศ (AGI) ในระหว่างการปฏิสัมพันธ์กับเพศเมียในครั้งต่อๆ ไป น่าสนใจที่จะทราบว่าผลกระทบเชิงลบทางพฤติกรรมจากการสัมผัสกับตัวเมียที่อยู่ในช่วงติดสัดตั้งแต่อายุยังน้อยจะคงอยู่ต่อไปจนถึงวัยรุ่นและวัยผู้ใหญ่หรือไม่ โดยเฉพาะอย่างยิ่งเมื่อพิจารณาว่าการสัมผัสกับตัวเมียที่อยู่ในช่วงติดสัดซ้ำๆในช่วงวัยรุ่นโดยทั่วไปจะช่วยส่งเสริมการแสดงออกของพฤติกรรมสืบพันธุ์ของตัวผู้ ( Molenda-Figueira, Salas-Ramirez, Schulz, Zehr, Montalto, and Sisk, 2007 )

มะเดื่อ. 5
การตอบสนองของระบบโดปามีนในบริเวณมีเดียลพรีออปติก (MPOA) ของสมองเพศชายก่อนวัยเจริญพันธุ์และวัยผู้ใหญ่ ต่อฟีโรโมนเพศหญิงที่อยู่ในสารคัดหลั่งจากช่องคลอด เพศชายวัยผู้ใหญ่แสดงให้เห็นการเพิ่มขึ้นของกิจกรรมโดปามีนใน MPOA เมื่อสัมผัสกับสารคัดหลั่งจากช่องคลอดของเพศหญิง ในขณะที่เพศชายก่อนวัยเจริญพันธุ์ไม่แสดงการเพิ่มขึ้นของการตอบสนองของระบบโดปามีนใน MPOA ต่อฟีโรโมนเพศหญิง (ดัดแปลงจากSchulz, KM, Richardson, HN, Romeo, RD, Morris, JA, Lookingland, KJ, and Sisk, CL, 2003 )

แม้ว่าการให้แอนโดรเจนก่อนวัยเจริญพันธุ์จะไม่สามารถกระตุ้นการผสมพันธุ์ได้ แต่ผลงานวิจัยล่าสุดจากห้องปฏิบัติการของเราชี้ให้เห็นว่าระบบประสาทของหนูแฮมสเตอร์มีความไวต่อการทำงานของเทสโทสเตอโรนในการควบคุมพฤติกรรมการสืบพันธุ์ก่อนวัยรุ่น ( Schulz, Zehr, Salas-Ramirez, and Sisk, 2007 ) การตัดอัณฑะร่วมกับการได้รับเทสโทสเตอโรนเป็นเวลา 19 วันก่อนหรือระหว่างวัยรุ่น แต่ไม่ใช่หลังวัยรุ่น ช่วยกระตุ้นพฤติกรรมการขึ้นคร่อมเมื่อได้รับเทสโทสเตอโรนอีกครั้งในวัยผู้ใหญ่ หนูแฮมสเตอร์เพศผู้ที่ได้รับเทสโทสเตอโรนก่อนวัยเจริญพันธุ์ยังแสดงพฤติกรรมการสอดใส่มากกว่าหนูแฮมสเตอร์เพศผู้ที่ได้รับเทสโทสเตอโรนระหว่างหรือหลังวัยเจริญพันธุ์ ( Schulz et al., 2007 ) ข้อมูลเหล่านี้ชี้ให้เห็นว่าความสามารถของเทสโทสเตอโรนในการควบคุมวงจรประสาททางพฤติกรรมลดลงตามอายุ และวัยรุ่นเป็นจุดสิ้นสุดของช่วงเวลาที่ไวต่อการได้รับเทสโทสเตอโรนหลังคลอดที่ยาวนาน
เภสัชแอนโดรเจน
ข้อมูลข้างต้นชี้ให้เห็นว่าสเตียรอยด์จากต่อมเพศที่ผลิตขึ้นเองภายในร่างกายช่วยกระตุ้นพฤติกรรมที่เกิดจากแรงจูงใจในช่วงวัยรุ่น แล้วจะเกิดอะไรขึ้นถ้าหากบุคคลนั้นใช้แอนโดรเจนในปริมาณสูงถึง 100 เท่าของความเข้มข้นทางสรีรวิทยาปกติ? นี่คือปัญหาของการใช้สเตียรอยด์อะนาโบลิก-แอนโดรเจนิก (AAS) ในทางที่ผิด (ดูในBrower, 2002 ; Clark and Henderson, 2003 ) ขออธิบายเพิ่มเติมสักเล็กน้อย: AAS ทั้งหมดเป็นอนุพันธ์ของเทสโทสเตอโรน AAS ทั้งหมดมีโครงสร้างคาร์บอนที่มีวงแหวนเชื่อมต่อกัน 4 วง ส่วนใหญ่มีคาร์บอน 19 อะตอม AAS ถูกใช้เป็นหลักเพื่อผลในการสร้างกล้ามเนื้อ (อะนาโบลิก) อย่างไรก็ตาม ดังชื่อของมัน AAS ก็มีคุณสมบัติแอนโดรเจนิกด้วย เทสโทสเตอโรนเป็นตัวเลือกที่เหมาะสมในการศึกษาในสัตว์เพื่อสำรวจกลไกพื้นฐานของการให้รางวัลจากแอนโดรเจน และยังคงเป็นตัวเลือกยอดนิยมสำหรับผู้ใช้ที่เป็นมนุษย์เช่นกัน โดยส่วนใหญ่อยู่ในรูปของเอสเทอร์เทสโทสเตอโรนออกฤทธิ์นาน เช่น เทสโทสเตอโรนโพรพิโอเนต ในปี 2006 เทสโทสเตอโรนเป็นสารต้องห้ามที่พบมากที่สุดในการตรวจปัสสาวะในห้องปฏิบัติการที่ได้รับการรับรองจาก WADA ( WADA, 2006 ) เทสโทสเตอโรนคิดเป็นสัดส่วนมากที่สุด (34%) ของผลการตรวจปัสสาวะที่เป็นบวกสำหรับ AAS ในการแข่งขันกีฬาโอลิมปิกที่ซิดนีย์ปี 2000 ( Van Eenoo และ Delbeke, 2003 ) ในทำนองเดียวกัน ในการตรวจปัสสาวะของผู้ใช้ AAS พบว่า 41% มีผลตรวจเป็นบวกสำหรับเทสโทสเตอโรน ( Brower, Catlin, Blow, Eliopulos, Beresford, 1991 ) ในปริมาณสูง AAS ทำให้เกิดการเปลี่ยนแปลงพฤติกรรมอย่างมีนัยสำคัญ โดยเฉพาะอย่างยิ่ง เนื่องจากความสัมพันธ์ใกล้ชิดกับเทสโทสเตอโรน การใช้ AAS ในช่วงวัยรุ่นดูเหมือนจะรบกวนสภาพแวดล้อมของสเตียรอยด์ตามปกติในระบบประสาทของวัยรุ่นที่กำลังพัฒนา รวมถึงปริมาณ เวลา และชนิดของการได้รับสเตียรอยด์
เช่นเดียวกับยาเสพติดผิดกฎหมายอื่นๆ การใช้สเตียรอยด์ในมนุษย์เป็นปัญหาของวัยรุ่น จากการสำรวจการใช้ยาเสพติดในครัวเรือนระดับชาติปี 1994 ( SAMHSA/OAS, 1996 ) พบว่าการใช้สเตียรอยด์สูงสุดในช่วงปลายวัยรุ่นที่อายุ 18 ปี นอกจากนี้ ในการสำรวจ Monitoring the Future ( Johnston, O'Malley และ Bachman, 2003 ) อัตราการใช้สเตียรอยด์ตลอดชีวิตในกลุ่มนักเรียนมัธยมปลาย (2.7%) เทียบได้กับการใช้โคเคน (3.5%) หรือเฮโรอีน (1.4%) การใช้สเตียรอยด์ยังพบได้บ่อยขึ้นในกลุ่มอายุที่น้อยลงด้วย โดย 2.5% ของนักเรียนชั้นมัธยมศึกษาปีที่ 2 (อายุ 13-14 ปี) เคยใช้สเตียรอยด์ ซึ่งใกล้เคียงกับอัตราการใช้โคเคน (2.5%) และเฮโรอีน (1.6%) แนวโน้มการใช้ AAS ในวัยรุ่นตอนต้นนี้เป็นเรื่องที่น่ากังวลเป็นอย่างยิ่ง เนื่องจากมีข้อกังวลอยู่ 2 ประการ คือ 1) วัยรุ่นอาจมีความเสี่ยงเป็นพิเศษต่อการใช้ AAS ในทางที่ผิด และ 2) การที่วัยรุ่นได้รับ AAS ในระดับเภสัชวิทยาอาจส่งผลกระทบอย่างมากต่อการเจริญเติบโตตามปกติของสมองและพฤติกรรม ทำให้เกิดการตอบสนองทางสัณฐานวิทยาและพฤติกรรมที่เกินจริง ทั้งในระยะเฉียบพลันและเรื้อรัง
การรุกรานที่ไม่เหมาะสมคือการตอบสนองเชิงพฤติกรรมซึ่งส่วนใหญ่มักเกี่ยวข้องกับการใช้ AAS ในทางที่ผิด ในรายงานผู้ป่วยที่ตีพิมพ์การใช้สเตียรอยด์นั้นมีส่วนเกี่ยวข้องในคดีฆาตกรรมหลายครั้งConacher และคนงาน 1989; สมเด็จพระสันตะปาปาและ Katz, 1990; Pope, Kouri, Powell, Campbell และ Katz, 1996; Schulte, Hall และ Boyer, 1993) ในการสำรวจผู้ใช้ AAS ในปัจจุบันความก้าวร้าวและความหงุดหงิดที่สูงขึ้นเป็นผลข้างเคียงที่พบได้บ่อยที่สุดจากการใช้ AAS (บอนด์ชอยและพระสันตะปาปา 1995; Galligani, Renck และ Hansen, 1996; Midgley, Heather และ Davies, 2001; Parrott, Choi และ Davies, 1994; Perry, Kutscher, Lund, Yates, Holman และ Demers, 2003) อย่างไรก็ตามด้วยช่วงของการเปิดรับแอนโดรเจนความหลากหลายของอาการทางจิตเวชและความเป็นไปได้ของความผิดปกติทางจิตเวชที่มีอยู่ก่อนมันเป็นเรื่องยากที่จะกำหนดบทบาทที่แม่นยำของ AAS ในกรณีเหล่านี้ของการรุกรานของมนุษย์ ผลลัพธ์จากการศึกษาในอนาคตของอาสาสมัครมนุษย์ที่ได้รับการฉีด AAS นั้นได้รับการผสม: Tricker et al (1996) และ O'Connor et al (2004) รายงานไม่เพิ่มพฤติกรรมโกรธในขณะที่การศึกษาอื่น ๆ ได้สังเกตเห็นการรุกรานที่เพิ่มขึ้น (Daly, Su, Schmidt, Pickar, Murphy และ Rubinow, 2001; Hannan, Friedl, Zold, Kettler และ Plymate, 1991; Kouri, Lukas, Pope, และ Oliva, 1995; สมเด็จพระสันตะปาปาและ Katz, 1994; Su, Pagliaro, Schmidt, Pickar, Wolkowitz และ Rubinow, 1993) อย่างไรก็ตามมันเป็นสิ่งสำคัญที่ต้องจำไว้ว่าปริมาณยาที่ให้แก่อาสาสมัครของมนุษย์นั้นต่ำกว่าปริมาณที่ได้รับการสนับสนุนบนเว็บไซต์สร้างร่างกายและระยะเวลาการรักษาโดยทั่วไปจะสั้น ดังนั้นในเรื่องความสมดุลดูเหมือนว่ายุติธรรมที่จะสรุปว่า AAS มีศักยภาพที่จะปรับปรุงพฤติกรรมแบบ agonistic อย่างน้อยในบุคคลที่มีความอ่อนไหว สมเด็จพระสันตะปาปาและคณะ (1994) พบว่า AAS ล้วงเอาอาการทางจิตเวชในบุคคลที่มีช่องโหว่
การศึกษาในสัตว์ยังให้หลักฐานที่น่าเชื่อถือเกี่ยวกับความก้าวร้าวที่เกิดจาก AAS หนูแฮมสเตอร์เพศผู้ที่ได้รับการรักษาด้วยสเตียรอยด์ในปริมาณสูงเป็นเวลานานจะมีระยะเวลาในการโจมตีสั้นลงและมีจำนวนการโจมตีและการกัดต่อผู้บุกรุกเพศผู้มากกว่าเมื่อเทียบกับเพศผู้ที่ไม่ได้รับการรักษา ( Harrison, Connor, Nowak, Nash, and Melloni, 2000 ; Melloni, Connor, Hang, Harrison, and Ferris, 1997 ) ในทำนองเดียวกัน การกระตุ้นเพียงเล็กน้อย (การหยิกหาง) ทำให้ความก้าวร้าวเพิ่มขึ้นอย่างต่อเนื่องในหนูเพศผู้ที่เป็นวัยรุ่น รวมถึงความก้าวร้าวต่อเพศเมียด้วย ( Cunningham and McGinnis, 2006 ) ที่น่ากังวลยิ่งกว่านั้น การได้รับ AAS ในวัยรุ่นของหนูแฮมสเตอร์ทำให้พฤติกรรมก้าวร้าวเพิ่มขึ้นอย่างถาวรซึ่งยังคงอยู่แม้หลังจากหยุดใช้สเตียรอยด์แล้ว ( Grimes and Melloni, 2006 ) การเปลี่ยนแปลงพฤติกรรมเหล่านี้มาพร้อมกับการปรับโครงสร้างวงจรประสาทในไฮโปทาลามัสส่วนหน้าอย่างถาวร โดยเฉพาะอย่างยิ่ง การได้รับสาร AAS ในช่วงวัยรุ่นของหนูแฮมสเตอร์จะเพิ่มระดับอาร์จินีนวาโซเพรสซิน (AVP, Grimes และ Melloni, 2006 ) และลดระดับเซโรโทนินและตัวรับเซโรโทนิน 5HT1A และ 5HT1B ( Ricci, Rasakham, Grimes และ Melloni, 2006 ) จึงไม่น่าแปลกใจที่ AAS จะเปลี่ยนแปลงระดับ AR ในสมองด้วยเช่นกัน การได้รับเทสโทสเตอโรนหรือแนนด์โรโลนเป็นเวลานานจะเพิ่มระดับ AR ในนิวเคลียสของเซลล์ในหนูตัวผู้ ( Menard และ Harlan, 1993 ; Wesson และ McGinnis, 2006 ) ดังนั้น จึงมีความเป็นไปได้ที่ AAS จะเพิ่มพฤติกรรมที่ขึ้นอยู่กับแอนโดรเจน ทั้งโดยการเสริมแอนโดรเจนภายในร่างกายและโดยการเพิ่มการตอบสนองต่อแอนโดรเจนผ่านการเพิ่มการแสดงออกของ AR
เมื่อเปรียบเทียบกับพฤติกรรมก้าวร้าว สารสเตียรอยด์อนาโบลิก (AAS) มีผลต่อพฤติกรรมการผสมพันธุ์ในสัตว์ฟันแทะเพศผู้ค่อนข้างน้อย และการตอบสนองขึ้นอยู่กับชนิดของสเตียรอยด์ที่ใช้ (ดูในClark และ Henderson, 2003 ) ในหนูแฮมสเตอร์เพศผู้ที่บริโภคเทสโทสเตอโรนในรูปแบบสารละลายทางปาก การหลั่งน้ำอสุจิเพิ่มขึ้นตามปริมาณที่ได้รับ (Wood, 2002) อย่างไรก็ตาม ทั้งเทสโทสเตอโรนและแนนด์โรโลนไม่ได้ช่วยเพิ่มการผสมพันธุ์ในหนูเพศผู้ที่อยู่ในวัยรุ่น สตาโนโซลอล ซึ่งเป็น AAS ที่มีฤทธิ์ค่อนข้างอ่อนและมีฤทธิ์แอนโดรเจนน้อยมาก กลับยับยั้งทั้งการผสมพันธุ์และความก้าวร้าว (Farrell และ McGinnis, 2003) ซึ่งสันนิษฐานว่าเกิดจากการลดระดับแอนโดรเจนในร่างกาย
สิ่งสำคัญอย่างยิ่งที่ควรทราบคือ แฮมสเตอร์วัยรุ่นและแฮมสเตอร์โตเต็มวัยอาจแสดงปฏิกิริยาทางพฤติกรรมที่แตกต่างกันต่อการได้รับสาร AAS ในขณะที่ AAS เพิ่มพฤติกรรมก้าวร้าวในแฮมสเตอร์เพศผู้ในวัยรุ่นอย่างเห็นได้ชัด การรักษาแบบเดียวกันในวัยผู้ใหญ่กลับทำให้พฤติกรรมก้าวร้าวเพิ่มขึ้นเพียงเล็กน้อยและลดพฤติกรรมทางเพศลงอย่างมีนัยสำคัญ ( Salas-Ramirez, Montaldo และ Sisk, 2008 ) นี่สอดคล้องกับแนวคิดที่ว่าวัยรุ่นเป็นช่วงเวลาที่ไวต่อการทำงานของแอนโดรเจน นอกจากนี้ เช่นเดียวกับแฮมสเตอร์เพศผู้โตเต็มวัยที่สร้างความทนทานต่อเทสโทสเตอโรนจากภายนอก ( Peters และ Wood, 2005 ) เราเชื่อว่าแฮมสเตอร์เพศผู้ที่กำลังพัฒนาจะสร้างความทนทานต่อเทสโทสเตอโรนเมื่อโตเต็มวัย ดังนั้น ผลกระทบของ AAS จึงเปลี่ยนแปลงไปตามช่วงพัฒนาการของวัยรุ่น และการได้รับ AAS ในวัยรุ่นอาจทำให้เกิดรูปแบบพฤติกรรมก้าวร้าวและทางเพศที่มากเกินไป ซึ่งอาจคงอยู่ไปจนถึงวัยผู้ใหญ่
การเสริมฤทธิ์ของแอนโดรเจน
การผสมพันธุ์และการต่อสู้ต่างก็ให้ผลตอบแทน (อย่างน้อยก็ถ้าคุณชนะการต่อสู้) หนูตัวผู้จะกดคันโยกซ้ำๆ เพื่อผสมพันธุ์กับหนูตัวเมีย ( Everitt และ Stacey, 1987 ) ในทำนองเดียวกัน หนูตัวผู้และหนูแฮมสเตอร์ตัวเมียจะสร้างความชอบสถานที่แบบมีเงื่อนไข (CPP) สำหรับสถานที่ที่พวกมันเคยชนะการต่อสู้มาก่อน ( Martinez, Guillen-Salazar, Salvador และ Simon, 1995 ; Meisel และ Joppa, 1994 ) หาก AAS สามารถเพิ่มพฤติกรรมทางสังคมที่ให้ผลตอบแทนได้สูงกว่าระดับที่พบได้ทั่วไปในสัตว์เพศผู้ที่มีอวัยวะสืบพันธุ์ครบถ้วน ก็เป็นเรื่องสมเหตุสมผลที่จะคาดหวังว่าเทสโทสเตอโรนเองอาจให้ผลตอบแทนเช่นกัน สิ่งนี้ได้รับการทดสอบโดยใช้แบบจำลองสัตว์สองแบบที่ได้รับการยอมรับอย่างดีสำหรับการให้รางวัลและการเสริมแรง ได้แก่ CPP และการให้ยาด้วยตนเอง ผลการศึกษาเหล่านี้แสดงให้เห็นว่าเทสโทสเตอโรนเป็นการเสริมแรงในบริบทการทดลองที่ผลกระทบทางด้านการสร้างกล้ามเนื้อและประสิทธิภาพทางการกีฬาไม่เกี่ยวข้อง ในการทดลอง CPP สารทดสอบจะถูกจับคู่ซ้ำๆ กับสภาพแวดล้อมเฉพาะ (ตัวอย่างเช่น ห้องเฉพาะในอุปกรณ์ทดสอบ) เมื่อสัตว์เชื่อมโยงสารทดสอบที่ให้รางวัลกับสภาพแวดล้อมนั้นแล้ว มันจะแสวงหาสภาพแวดล้อมนั้นแม้ว่าจะไม่มีรางวัลก็ตาม รายงานแรกๆ เกี่ยวกับรางวัลจากแอนโดรเจนในสัตว์ทดลองใช้การฉีดเทสโทสเตอโรนเข้าสู่ระบบเพื่อกระตุ้น CPP ในหนูตัวผู้ ( Arnedo, Salvador, Martinez-Sanchis, and Gonzalez-Bono, 2000 ; Arnedo, Salvador, Martinez-Sanchis, and Pellicer, 2002 ) และหนูแรต ( Alexander, Packard, and Hines, 1994 ; de Beun, Jansen, Slangen, and Van de Poll, 1992 ) ต่อมา ห้องปฏิบัติการของเราได้ใช้การให้เทสโทสเตอโรนด้วยตนเองเพื่อแสดงให้เห็นถึงการเสริมแรงของแอนโดรเจน ( Johnson and Wood, 2001 ) เราพบว่าหนูแฮมสเตอร์ตัวผู้จะบริโภคสารละลายเทสโทสเตอโรนทางปากโดยสมัครใจ โดยใช้ทั้งการทดสอบเลือกสองขวดและการดื่มที่เกิดจากการกระตุ้นด้วยอาหาร ในการศึกษาต่อมา เราได้แสดงให้เห็นถึงการให้ยาทางหลอดเลือดดำด้วยตนเองในหนูและหนูแฮมสเตอร์ตัวผู้ ( Wood, Johnson, Chu, Schad, and Self, 2004 ) การให้ยาทางหลอดเลือดดำช่วยขจัดผลกระทบที่อาจทำให้เกิดความสับสนจากรสชาติหรือปริมาณอาหารในลำไส้ต่อการบริโภคแอนโดรเจน
ในบริบทของการใช้ AAS ในทางที่ผิด สิ่งสำคัญคือต้องแยกแยะความแตกต่างระหว่างผลกระทบส่วนกลางและส่วนปลายของแอนโดรเจน เนื่องจากเทสโทสเตอโรนมีผลกระทบอย่างกว้างขวางทั่วร่างกาย จึงอาจกล่าวได้ว่ารางวัลและการเสริมแรงจากการฉีดเทสโทสเตอโรนเข้าสู่ระบบเป็นผลรองมาจากฤทธิ์อะนาโบลิกและแอนโดรเจนิกของเทสโทสเตอโรนในระบบ กล่าวอีกนัยหนึ่ง เทสโทสเตอโรนอาจช่วยลดความเมื่อยล้าของกล้ามเนื้อและปรับปรุงการทำงานของข้อต่อ ทำให้สัตว์รู้สึกดีขึ้น อันที่จริง คำอธิบายนี้ถูกนำมาใช้ในเอกสารทางการแพทย์ (แม้จะไม่มีหลักฐานเชิงทดลอง) เพื่อโต้แย้งถึงศักยภาพในการพึ่งพาและการเสพติด AAS ( DiPasquale, 1998 ) อย่างไรก็ตาม Packard และคณะ ( Packard, Cornell, and Alexander, 1997 ) แสดงให้เห็นว่าการฉีดเทสโทสเตอโรนเข้าไปในสมองของหนูโดยตรงสามารถกระตุ้นให้เกิด CPP ได้ ในทำนองเดียวกัน ห้องปฏิบัติการของเราได้แสดงให้เห็นถึงการให้เทสโทสเตอโรนเข้าสู่โพรงสมอง (icv) ด้วยตนเองในแฮมสเตอร์ตัวผู้ ( Wood et al., 2004 ) การทดสอบ CPP ในสมองและการให้เทสโทสเตอโรนด้วยตนเองในช่องโพรงสมอง บ่งชี้ว่ามีเป้าหมายในระบบประสาทส่วนกลางที่ทำหน้าที่เสริมแรงแอนโดรเจน
เป็นที่น่าสังเกตว่า การเสริมแรงของเทสโทสเตอโรนไม่ได้เป็นไปตามกลไกเดียวกันกับที่เคยมีการพิสูจน์ไว้ก่อนหน้านี้สำหรับผลกระทบของสเตียรอยด์ต่อพฤติกรรมทางเพศ ดังที่ได้กล่าวไว้ก่อนหน้านี้ MPOA เป็นบริเวณสำคัญในการจัดระเบียบพฤติกรรมทางเพศของสัตว์ฟันแทะเพศผู้ ( Hull, Meisel, and Sachs, 2002 ) ในแฮมสเตอร์ MPOA มีตัวรับสเตียรอยด์จำนวนมาก และการฝังเทสโทสเตอโรนใน MPOA สามารถฟื้นฟูการทำงานทางเพศในแฮมสเตอร์ที่ถูกตัดอัณฑะเป็นเวลานาน ( Wood and Swann, 1999 ) ระยะเวลาของผลกระทบของสเตียรอยด์เหล่านี้ค่อนข้างช้า พฤติกรรมการขึ้นคร่อมยังคงอยู่เป็นเวลาหลายสัปดาห์หลังจากการตัดอัณฑะ และจำเป็นต้องได้รับสเตียรอยด์เป็นเวลานานเพื่อฟื้นฟูการผสมพันธุ์ในแฮมสเตอร์ที่ถูกตัดอัณฑะเป็นเวลานาน ( Noble and Alsum, 1975 ) อย่างไรก็ตาม การฉีดเทสโทสเตอโรนเข้าไปใน MPOA ของหนูตัวผู้ไม่สามารถกระตุ้นให้เกิด CPP ได้ ( King, Packard, and Alexander, 1999 ) สิ่งนี้ชี้ให้เห็นว่าบริเวณสมองอื่นๆ ก็มีความสำคัญต่อการเสริมแรงของแอนโดรเจนเช่นกัน
ในทางตรงกันข้าม หนูตัวผู้จะสร้าง CPP ต่อการฉีดเทสโทสเตอโรนใน Acb ( Packard et al., 1997 ) เช่นเดียวกับยาเสพติดชนิดอื่น ๆ DA น่าจะเป็นสารสื่อประสาทสำคัญสำหรับการเสริมแรงของเทสโทสเตอโรน: CPP ที่เกิดจากการฉีดเทสโทสเตอโรนเข้าสู่ระบบถูกยับยั้งโดยสารต้านตัวรับโดปามีน D1 และ D2 ( Schroeder and Packard, 2000 ) อย่างไรก็ตาม แตกต่างจากยาเสพติดชนิดอื่น ๆ การศึกษาของเราในหนูแฮมสเตอร์ชี้ให้เห็นว่าเทสโทสเตอโรนไม่ได้กระตุ้นการปล่อย DA ใน Acb ( Triemstra, Sato, and Wood, in press ) ในทำนองเดียวกัน การศึกษาในหนูตัวผู้แสดงให้เห็นว่าแอนโดรเจนไม่มีผลต่อระดับ DA พื้นฐานหรือการปล่อย DA ที่กระตุ้นโดยแอมเฟตามีน ( Birgner, Kindlundh-Hogberg, Nyberg, and Bergstrom, 2006 ; แต่ดูเพิ่มเติมที่Clark, Lindenfeld, and Gibbons, 1996 ) นอกจากนี้ เทสโทสเตอโรนยังมีอิทธิพลต่อระดับของเนื้อเยื่อ DA ใน Acb เพียงเล็กน้อย ( Thiblin, Finn, Ross, and Stenfors, 1999 ) โดยรวมแล้ว ข้อมูลเหล่านี้ชี้ให้เห็นว่า แม้ว่าการเสริมแรงด้วยเทสโทสเตอโรนอาจเปลี่ยนแปลงกิจกรรมของ DA ใน Acb ในที่สุด แต่กลไกอาจแตกต่างจากโคเคนหรือสารกระตุ้นอื่นๆ ในเรื่องนี้ ข้อมูลล่าสุดชี้ให้เห็นว่า การได้รับ AAS อย่างเรื้อรังอาจเปลี่ยนแปลงความไวต่อ DA โดยการเปลี่ยนแปลงการเผาผลาญ DA ( Kurling, Kankaanpaa, Ellermaa, Karila, and Seppala, 2005 ) ระดับของตัวรับ DA ( Kindlundh, Lindblom, Bergstrom, Wikberg, and Nyberg, 2001 ; Kindlundh, Lindblom, and Nyberg, 2003 ) หรือตัวขนส่ง DA ( Kindlundh, Bergstrom, Monazzam, Hallberg, Blomqvist, Langstrom, and Nyberg, 2002 )
ในปัจจุบัน สัญญาณสเตียรอยด์ ตัวรับ และบริเวณในสมองที่ออกฤทธิ์เพื่อเสริมแรงเทสโทสเตอโรนยังไม่เป็นที่ทราบแน่ชัด จากการศึกษาล่าสุดในหนูแฮมสเตอร์จากห้องปฏิบัติการของเรา ผลการเสริมแรงของเทสโทสเตอโรนดูเหมือนจะถูกควบคุมโดยทั้งแอนโดรเจนและเอสโตรเจน ( DiMeo และ Wood, 2006 ) สเตียรอยด์อนาโบลิก (AAS) ที่ถูกใช้ในทางที่ผิดโดยทั่วไปนั้นรวมถึงแอนโดรเจนที่สามารถเปลี่ยนเป็นเอสโตรเจนได้และแอนโดรเจนที่ไม่สามารถเปลี่ยนเป็นเอสโตรเจนได้ ( Gallaway, 1997 ; WADA, 2006 ) ซึ่งหมายความว่าทั้ง AR และ ER อาจส่งสัญญาณกระตุ้นจากสเตียรอยด์เพื่อเป็นรางวัล นอกจากนี้ ยังมีความเป็นไปได้ที่การเสริมแรงของเทสโทสเตอโรนอาจถูกควบคุมโดยตัวรับแบบคลาสสิกและแบบไม่เกี่ยวข้องกับจีโนมร่วมกัน
หลักฐานหลายประการชี้ให้เห็นถึงบทบาทของตัวรับที่ไม่ขึ้นกับจีโนมในการเสริมแรงของ AAS นอกจากการกระจายตัวของ AR ใน Acb และ VTA ที่เบาบางแล้ว ระยะเวลาของการเสริมแรงของแอนโดรเจนยังรวดเร็ว (<30 นาที) และการประมวลผลสัญญาณผ่าน AR แบบคลาสสิกอาจไม่เร็วพอสำหรับการเสริมแรง ดังนั้น เพื่อทดสอบบทบาทของ AR ที่ไม่ขึ้นกับจีโนมในการเสริมแรงของ AAS เราจึงใช้เทคนิคเสริมสองวิธี ( รูปที่ 7 ) ในการทดลองหนึ่ง ( Sato, Johansen, Jordan และ Wood, 2006 ) เราอนุญาตให้หนูที่มีการกลายพันธุ์ของยีนที่ทำให้เกิดลักษณะเพศหญิงในอัณฑะ (Tfm ดูในฉบับนี้) ทำการให้ยาไดไฮโดรเทสโทสเตอโรน (DHT) ซึ่งเป็นแอนโดรเจนที่ไม่สามารถเปลี่ยนเป็นอะโรมาไทเซชันได้ การกลายพันธุ์ Tfm ทำให้การจับของลิแกนด์ที่ AR ลดลงอย่างมาก อย่างไรก็ตาม หนู Tfm และหนูตัวผู้สายพันธุ์ปกติยังคงให้ยา DHT ในปริมาณที่ใกล้เคียงกัน ซึ่งแสดงให้เห็นถึงผลกระทบที่ไม่ขึ้นกับจีโนมของ DHT ในการศึกษาครั้งต่อมา เราได้ตรวจสอบว่าหนูแฮมสเตอร์ตัวผู้จะสามารถใช้ DHT ที่เชื่อมต่อกับอัลบูมินในซีรั่มของวัว (BSA, รูปที่ 8 , Sato และ Wood, 2007 ) ด้วยตนเองหรือไม่ สารประกอบ DHT-BSA ไม่สามารถซึมผ่านเยื่อหุ้มเซลล์ได้ ดังนั้นผลกระทบของมันจึงจำกัดอยู่เฉพาะที่ผิวเซลล์ หนูแฮมสเตอร์สามารถใช้ DHT ด้วยตนเองได้ ดังที่เคยแสดงให้เห็นมาก่อน ( DiMeo และ Wood, 2006 ) พวกมันแสดงความชอบที่คล้ายคลึงกันต่อสารประกอบ DHT-BSA แต่ไม่สามารถใช้ BSA เพียงอย่างเดียวได้

มะเดื่อ. 7

มะเดื่อ. 8
ข้อมูลเหล่านี้ชี้ให้เห็นถึงบทบาทสำคัญของตัวรับแอนโดรเจน (AR) บนพื้นผิวเซลล์ในการเสริมฤทธิ์ของแอนโดรเจน ปัจจุบันยังไม่ทราบลักษณะที่แท้จริงของตัวรับดังกล่าว มีการเสนอแนะว่าแอนโดรเจนอาจออกฤทธิ์ที่พื้นผิวเซลล์โดยการจับกับตัวรับ AR บนเยื่อหุ้มเซลล์ที่เฉพาะเจาะจง ( Thomas, Dressing, Pang, Berg, Tubbs, Benninghoff, and Doughty, 2006โปรดดูในฉบับนี้ด้วย) ซึ่งอาจอยู่ในรูปของตัวรับ AR แบบคลาสสิกนอกนิวเคลียสดังที่รายงานในฮิปโปแคมปัส (Sarkey et al., ในฉบับนี้) หรืออีกทางหนึ่ง การศึกษาในอดีตยังได้อธิบายถึงตำแหน่งการจับสเตียรอยด์บนระบบส่งสัญญาณประสาทอื่นๆ โดยเฉพาะอย่างยิ่ง ฮอร์โมนสเตียรอยด์หลายชนิดรวมถึง AAS สามารถปรับเปลี่ยนตัวรับ GABA-A แบบอัลโลสเตอริกได้ ( Henderson, 2007 ; Lambert, Belelli, Peden, Vardy, and Peters, 2003 ) ในทำนองเดียวกัน นิวโรสเตียรอยด์ที่มีซัลเฟตสามารถปรับเปลี่ยนกิจกรรมของ ตัวรับ N -methyl- D -aspartate ชนิดย่อยได้ ( Malayev, Gibbs และ Farb, 2002 ) นี่เป็นประเด็นสำคัญสำหรับการวิจัยในอนาคต
ทำไมต้องมีพังผืด AR? ตามที่กล่าวไว้ก่อนหน้านี้มีการเชื่อมโยงอย่างใกล้ชิดระหว่างการหลั่งแอนโดรเจนกับพฤติกรรมทางสังคมที่คุ้มค่า เราสามารถคาดการณ์ได้ว่าการหลั่งฮอร์โมนเทสโทสเตอโรนที่เพิ่มขึ้นหลังจากการผสมพันธุ์หรือการต่อสู้จะช่วยเสริมสร้างพฤติกรรม ถ้าเป็นเช่นนั้นจำเป็นต้องมีการมีเพศสัมพันธ์อย่างรวดเร็วของการกระตุ้น (พฤติกรรม) และรางวัล (ฮอร์โมนเพศชาย) สิ่งนี้สามารถทำได้ดีที่สุดผ่านการผูกกับเยื่อหุ้มเซลล์ AR ในเรื่องนี้มันจะเป็นที่สนใจเพื่อตรวจสอบว่าการหลั่งแอนโดรเจนในระหว่างการผสมพันธุ์จะช่วยลดผลกระทบของพฤติกรรมทางเพศที่คุ้มค่าหรือไม่
สรุป
ที่นี่เราตรวจสอบหลักฐานที่ว่าแอนโดรเจนเป็นผู้ไกล่เกลี่ยที่มีศักยภาพของพฤติกรรมที่ได้รับแรงบันดาลใจสำหรับผู้ใหญ่และยิ่งกว่านั้นเวลาของการเปิดรับแอนโดรเจนในระหว่างการพัฒนาโปรแกรมและพฤติกรรมที่ขึ้นอยู่กับแรงจูงใจในวัยผู้ใหญ่ อะนาโบลิคสเตียรอยด์กลายเป็นยายอดนิยมสำหรับวัยรุ่นในสหรัฐอเมริกา ในขณะที่ AAS อาจไม่มีโคเคนหรือเฮโรอีนที่รุนแรง แต่เราเพิ่งเริ่มเข้าใจถึงศักยภาพในการเสริมและติดแอนโดรเจน โดยเฉพาะอย่างยิ่งเมื่อกีฬาเยาวชนเริ่มมีการแข่งขันมากขึ้นจึงมีแรงกดดันเพิ่มขึ้นในการพัฒนานักกีฬาให้ใช้สเตอรอยด์โดยเริ่มตั้งแต่อายุยังน้อย แนวโน้มนี้เป็นปัญหาในมุมมองของหลักฐานใหม่สำหรับการสุกของระบบประสาทสเตียรอยด์ที่มีความอ่อนไหวในวัยรุ่น
แม้ว่าทั้งสาธารณชนและชุมชนวิทยาศาสตร์จะตระหนักถึงการเปลี่ยนแปลงทางระบบประสาทอย่างลึกซึ้งที่เกิดขึ้นในช่วงวัยรุ่นมากขึ้น แต่การศึกษาเชิงทดลองเกี่ยวกับชีววิทยาประสาทของการพัฒนาในช่วงวัยแรกรุ่นยังคงมีจำกัด จึงจำเป็นต้องมีแบบจำลองสัตว์ในการศึกษาพัฒนาการของวัยรุ่น เพื่อตรวจสอบว่าช่วงเวลาของการได้รับฮอร์โมนในระหว่างการพัฒนาเพิ่มความเสี่ยงต่อความผิดปกติทางจิตและการใช้ยาเสพติดอย่างไร และประสบการณ์ประเภทใดที่ช่วยลดหรือเพิ่มผลกระทบทางพฤติกรรมจากการเบี่ยงเบนของช่วงเวลาการเข้าสู่วัยแรกรุ่น ตัวอย่างเช่น ปัจจัยทางสังคม เช่น อิทธิพลจากเพื่อนฝูง ทำให้ผลกระทบของช่วงเวลาการเข้าสู่วัยแรกรุ่นต่อการใช้สารเสพติดและแอลกอฮอล์รุนแรงขึ้น ( Biehl, Natsuaki, and Ge, 2007 ; Patton, Novy, Lee, and Hickok, 2004 ; Simons-Morton and Haynie, 2003 ; Wichstrom and Pedersen, 2001 ) แบบจำลองสัตว์เกี่ยวกับช่วงเวลาการเข้าสู่วัยแรกรุ่นจะช่วยให้ข้อมูลแก่การวิจัยในมนุษย์ และอาจนำไปสู่การแทรกแซงทางการรักษาที่มีประสิทธิภาพมากขึ้นในช่วงวัยรุ่น
กิตติกรรมประกาศ
เราขอขอบคุณ Eleni Antzoulatos, Cortney Ballard, Lucy Chu, Kelly Peters, Jennifer Triemstra, Jane Venier, Lisa Rogers และ Pamela Montalto สำหรับความช่วยเหลือในการศึกษาเหล่านี้ งานนี้สนับสนุนโดยทุนจาก NIH (DA12843 ถึง RIW, MH68764 ถึง CLS และ MH070125 ถึง KMS)
เชิงอรรถ
คำชี้แจงจากสำนักพิมพ์:นี่คือไฟล์ PDF ของต้นฉบับที่ยังไม่ได้แก้ไข ซึ่งได้รับการยอมรับให้ตีพิมพ์แล้ว เพื่อเป็นการบริการแก่ลูกค้า เราจึงจัดส่งต้นฉบับฉบับนี้ให้ ต้นฉบับจะได้รับการแก้ไข ตรวจสอบการจัดพิมพ์ และตรวจสอบหลักฐานการพิมพ์อีกครั้งก่อนที่จะตีพิมพ์ในรูปแบบที่สามารถอ้างอิงได้ในขั้นสุดท้าย โปรดทราบว่าในระหว่างกระบวนการผลิต อาจพบข้อผิดพลาดที่อาจส่งผลต่อเนื้อหา และข้อสงวนสิทธิ์ทางกฎหมายทั้งหมดที่เกี่ยวข้องกับวารสารยังคงมีผลบังคับใช้
อ้างอิง
- Alexander GM, Packard MG, Hines M. Testosterone มีคุณสมบัติทางอารมณ์ในหนูเพศผู้: ความหมายสำหรับพื้นฐานทางชีวภาพของแรงจูงใจทางเพศ ประสาทวิทยาศาสตร์เชิงพฤติกรรม. 1994;108: 424 8- [PubMed]
- Andersen SL เส้นทางการพัฒนาสมอง: จุดอ่อนหรือหน้าต่างแห่งโอกาส? ความคิดเห็นเกี่ยวกับประสาทและชีวพฤติกรรม 2003;27: 3 18- [PubMed]
- Andersen SL, Rutstein M, Benzo JM, Hostetter JC, Teicher MH ความแตกต่างทางเพศในการรับและการกำจัดโดปามีนมากเกินไป Neuroreport 1997;8: 1495 8- [PubMed]
- MT Arnedo, ซัลวาดอร์, มาร์ติเนซ - ซันชิสเอส, กอนซาเลซ - โบโนอีคุณสมบัติของเทสโทสเตอโรนในหนูเพศผู้: การศึกษานำร่อง เภสัชวิทยาชีวเคมีและพฤติกรรม 2000;65: 327 32-
- MT Arnedo, Salvador A, Martinez-Sanchis S, Pellicer O. ผลตอบแทนที่คล้ายคลึงกันของเทสโทสเตอโรนในหนูจัดอันดับในระยะสั้นและระยะยาว ชีววิทยาของการเสพติด 2002;7: 373 9- [PubMed]
- Arnold AP, Breedlove SM ผลกระทบระดับองค์กรและการเปิดใช้งานของสเตอรอยด์ทางเพศต่อสมองและพฤติกรรม: การวิเคราะห์ซ้ำ ฮอร์โมนและพฤติกรรม 1985;19: 469 98- [PubMed]
- Benes FM, Taylor JB, Cunningham MC การบรรจบกันและความเป็นพลาสติกของระบบ monoaminergic ในเยื่อหุ้มสมอง prefrontal ที่อยู่ตรงกลางในช่วงหลังคลอด: ผลกระทบต่อการพัฒนาของโรคจิต Cortex สมอง 2000;10: 1014 27- [PubMed]
- Benes FM, Turtle M, Khan Y, Farol P. Myelination ของเขตการถ่ายทอดสำคัญในรูปแบบ hippocampal เกิดขึ้นในสมองของมนุษย์ในช่วงวัยเด็กวัยรุ่นและวัยผู้ใหญ่ จดหมายเหตุของจิตเวชทั่วไป 1994;51: 477 84- [PubMed]
- Biehl MC, Natsuaki MN, Ge XJ อิทธิพลของจังหวะเวลาผับต่อการใช้แอลกอฮอล์และวิถีการดื่มหนัก วารสารเยาวชนและวัยรุ่น 2007;36: 153 167-
- Birgner C, Kindlundh-Hogberg AM, Nyberg F, Bergstrom L. จดหมายประสาทวิทยา 2006 การเปลี่ยนแปลงระดับ extracellular ของ DOPAC และ HVA ในหนูนิวเคลียส accumbens เชลล์ในการตอบสนองต่อการบริหาร nandrolone ย่อยเรื้อรังและความท้าทายแอมเฟตามีนที่ตามมา
- ตราสารหนี้ AJ, Choi PY, Pope HG., Jr การประเมินความลำเอียงและอารมณ์ในผู้ใช้และผู้ที่ไม่ใช้สเตียรอยด์แอนโบลิกและแอนโดรเจน การพึ่งพายาและแอลกอฮอล์ 1995;37: 241 5- [PubMed]
- Brower KJ Anabolic เตียรอยด์และการพึ่งพา รายงานจิตเวชศาสตร์ปัจจุบัน 2002;4: 377 87- [PubMed]
- Brower KJ, Catlin DH, Blow FC, Eliopulos GA, Beresford TP การทดสอบทางคลินิกและการทดสอบปัสสาวะสำหรับการใช้สเตียรอยด์ anabolic-androgenic และการพึ่งพาอาศัยกัน American Journal of Drug & Alcohol Abuse. 1991;17: 161 171- [PubMed]
- Celotti F, Negri-Cesi P, Poletti A. การเผาผลาญสเตียรอยด์ในสมองของสัตว์เลี้ยงลูกด้วยนม: 5alpha-reduction และ aromatization ประกาศการวิจัยสมอง 1997;44: 365 75- [PubMed]
- Chung WC, De Vries GJ, Swaab DF ความแตกต่างทางเพศของนิวเคลียสเตียงของ stria terminalis ในมนุษย์อาจขยายไปสู่วัยผู้ใหญ่ วารสารประสาทวิทยา 2002;22: 1027 33- [PubMed]
- Clark AS, Henderson LP การตอบสนองเชิงพฤติกรรมและสรีรวิทยาต่อเตียรอยด์แอนโบลิกและแอนโดรเจน ความคิดเห็นเกี่ยวกับประสาทและชีวพฤติกรรม 2003;27: 413 36- [PubMed]
- Clark AS, Lindenfeld RC, ชะนี CH Anabolic-androgenic เตียรอยด์และรางวัลสมอง เภสัชวิทยาชีวเคมีและพฤติกรรม 1996;53: 741 5-
- Conacher GN คนงาน DG อาชญากรรมรุนแรงอาจเกี่ยวข้องกับการใช้สเตียรอยด์โบลิค วารสารจิตเวชอเมริกัน 1989;146: 679 [PubMed]
- คันนิงแฮม RL, McGinnis MY การยั่วยุทางกายภาพของสเตียรอยด์อะนาโบลิคแอนโดรเจนและแอนโดรเจนที่สัมผัสกับหนูตัวผู้ทำให้เกิดการรุกรานต่อผู้หญิง ฮอร์โมนและพฤติกรรม 2006;50: 410 6- [PubMed]
- Daly RC, Su TP, Schmidt PJ, Pickar D, Murphy DL, Rubinow DR ของเหลวในสมองและการเปลี่ยนแปลงพฤติกรรมหลังจากการบริหาร methyltestosterone: การค้นพบเบื้องต้น จดหมายเหตุของจิตเวชทั่วไป 2001;58: 172 7- [PubMed]
- EC Davis, Shryne JE, Gorski RA dimorphisms ทางเพศโครงสร้างในนิวเคลียส anteroventral periventricular ของหนู hypothalamus มีความไวต่อสเตียรอยด์อวัยวะสืบพันธุ์ perinatally แต่พัฒนา peripubertally neuroendocrinology 1996;63: 142 8- [PubMed]
- de Beun R, Jansen E, สแลงเจแอล, แวนเดลโพล เทสโทสเตอโรนเป็นตัวกระตุ้นและกระตุ้นการเลือกปฏิบัติในหนู: ผลกระทบทางเพศและยาขึ้นอยู่กับปริมาณ สรีรวิทยาและพฤติกรรม. 1992;52: 629 34- [PubMed]
- เดคาบันเอเอส การเปลี่ยนแปลงของน้ำหนักสมองในช่วงชีวิตมนุษย์: ความสัมพันธ์ของน้ำหนักสมองกับความสูงของร่างกายและน้ำหนักของร่างกาย พงศาวดารของประสาทวิทยา 1978;4: 345 56- [PubMed]
- Di Chiara G, Imperato A. ยาเสพติดที่ถูกทารุณกรรมโดยมนุษย์เพิ่มความเข้มข้นของโดปามีนใน synaptic dopamine ในระบบ mesolimbic ของหนูที่เคลื่อนไหวอย่างอิสระ การดำเนินการของ National Academy of Sciences ของสหรัฐอเมริกา 1988;85: 5274 8- [บทความฟรี PMC] [PubMed]
- DiMeo AN, Wood RI การบริหารตนเองของสโตรเจนและ dihydrotestosterone ในแฮมสเตอร์เพศชาย ฮอร์โมนและพฤติกรรม 2006;49: 519 26- [PubMed]
- DiPasquale M. เตียรอยด์ Anabolic ใน: Tarter RE, Ammerman RT, Ott PJ, Editors คู่มือการใช้สารเสพติด กด Plenum; นิวยอร์ก: 1998 pp. 547 – 565
- Dominguez J, Riolo JV, Xu Z, Hull EM ระเบียบโดย amygdala อยู่ตรงกลางของการมีเพศสัมพันธ์และการปลดปล่อยโดพามีนอยู่ตรงกลาง วารสารประสาทวิทยา 2001;21: 349 355- [PubMed]
- Dominguez JM, Hull EM การกระตุ้นของ amygdala อยู่ตรงกลางช่วยเพิ่มการปลดปล่อยโดพามีนอยู่ตรงกลาง: ผลกระทบต่อพฤติกรรมทางเพศของหนูเพศชาย การวิจัยสมอง 2001;917: 225 229- [PubMed]
- Du J, Lorrain DS, Hull EM ตอนลดลง extracellular แต่เพิ่มเซลล์โดพามีนในพื้นที่ preoptic อยู่ตรงกลางของหนูเพศผู้ การวิจัยสมอง 1998;782: 11 17- [PubMed]
- Eckenhoff MF, Rakic P. ธรรมชาติและชะตากรรมของเซลล์ proliferative ในฮิพโพแคมปัส dentate gyrus ในช่วงชีวิตของลิงจำพวก วารสารประสาทวิทยา 1988;8: 2729 47- [PubMed]
- Everitt BJ, Stacey P. การศึกษาพฤติกรรมเครื่องมือพร้อมการเสริมแรงทางเพศในหนูตัวผู้ (Rattus norvegicus): II. ผลของรอยโรคบริเวณ preoptic การตัดอัณฑะและฮอร์โมนเพศชาย วารสารจิตวิทยาเปรียบเทียบ. 1987;101: 407 19- [PubMed]
- Gallaway S. พระคัมภีร์เตียรอยด์ เบลล์อินเตอร์เนชั่นแนลเพรส; แซคราเมนโตแคลิฟอร์เนีย: 1997
- Galligani N, Renck A, Hansen S. ข้อมูลส่วนตัวของผู้ชายที่ใช้สเตียรอยด์แอนโดรโบลิกและแอนโดรเจน ฮอร์โมนและพฤติกรรม 1996;30: 170 5- [PubMed]
- กริมส์ JM, Melloni RH., จูเนียร์การเปลี่ยนแปลงเป็นเวลานานในระบบประสาท serotonin หลังจากการหยุดชะงักของการสัมผัสเตียรอยด์ anabolic-androgenic วัยรุ่นในแฮมสเตอร์ (Mesocricetus auratus) ประสาทวิทยาศาสตร์เชิงพฤติกรรม. 2006;120: 1242 51- [PubMed]
- Hannan CJ, Jr, Friedl KE, Zold A, Kettler TM, Plymate SR การเปลี่ยนแปลงของกรด homovanillic ทางจิตวิทยาและเซรั่มในผู้ชายที่ได้รับยาแอนโดรเจน Psychoneuroendocrinology 1991;16: 335 43- [PubMed]
- Harrison RJ, Connor DF, Nowak C, Nash K, Melloni RH., การรักษาด้วยสเตียรอยด์ anabolic-androgenic anabolic แอนโดรลิกเรื้อรังระหว่างวัยรุ่นเพิ่มขึ้น vasopressin ล่วงหน้าและการรุกรานในแฮมสเตอร์ที่ไม่บุบสลาย Psychoneuroendocrinology 2000;25: 317 38- [PubMed]
- เขาเจทีมงาน FT Neurogenesis ลดลงในระหว่างการสุกของสมองจากวัยรุ่นไปจนถึงวัยผู้ใหญ่ เภสัชวิทยาชีวเคมีและพฤติกรรม 2007;86: 327 33-
- ห้างหุ้นส่วนจำกัดเฮนเดอร์สัน การปรับสเตียรอยด์ของการส่งผ่านตัวกลางรับ GABAA ในมลรัฐ: ผลต่อการทำงานของระบบสืบพันธุ์ Neuropharmacology 2007;52: 1439 53- [บทความฟรี PMC] [PubMed]
- Hull EM, Du J, Lorrain DS, Matuszewich L. โดปามีน extracellular ในพื้นที่ preoptic อยู่ตรงกลาง: ความหมายสำหรับแรงจูงใจทางเพศและการควบคุมฮอร์โมนของการมีเพศสัมพันธ์ วารสารประสาทวิทยา 1995;15: 7465 7471- [PubMed]
- ฮัลล์ EM, Meisel RL, Sachs BD พฤติกรรมทางเพศชาย ใน: Pfaff DW, Arnold AP, Etgen AM, Fahrbach SE, Rubin RT, บรรณาธิการ ฮอร์โมนสมองและพฤติกรรม สื่อวิชาการ; นิวยอร์ก: 2002 pp. 3 – 137
- ฮัลล์ EM, Wood RI, McKenna KE ชีววิทยาของพฤติกรรมทางเพศชาย ใน: Neill JD, editor สรีรวิทยาการสืบพันธุ์ ฉบับ 1 Elsevier Press; นิวยอร์ก: 2006 pp. 1729 – 1824
- Huttenlocher PR, Dabholkar AS ความแตกต่างในระดับภูมิภาคใน synaptogenesis ในเปลือกสมองมนุษย์ วารสารประสาทวิทยาเปรียบเทียบ 1997;387: 167 78- [PubMed]
- Johnson LR, Wood RI เทสโทสเตอโรนรับประทานด้วยตนเองในแฮมสเตอร์ชาย neuroendocrinology 2001;73: 285 92- [PubMed]
- Johnston LD, O'Malley PM, Bachman JG นักเรียนมัธยม (NIH สิ่งพิมพ์หมายเลข 03 – 5375) I. Bethesda, MD: สถาบันยาเสพติดแห่งชาติ; 2003 การติดตามผลการสำรวจระดับชาติในอนาคตเรื่องการใช้ยา 1975 – 2002
- มูลนิธิครอบครัวไกเซอร์ กิจกรรมทางเพศของวัยรุ่นสหรัฐฯ 2005 pp. # 3040 – 02
- Kashon ML, Hayes MJ, Shek PP, Sisk CL กฎระเบียบของระบบภูมิคุ้มกันของแอนโดรเจนในสมองกับตัวรับแอนโดรเจนโดยแอนโดรเจน ชีววิทยาการสืบพันธุ์ 1995;52: 1198 205- [PubMed]
- Kindlundh AM, Bergstrom M, Monazzam A, Hallberg M, Blomqvist G, Langstrom B, Nyberg F. ผล Dopaminergic หลังการรักษาเรื้อรังด้วย nandrolone ที่มองเห็นได้ในสมองของหนูโดยการถ่ายภาพเอกซเรย์โพซิตรอน ความก้าวหน้าใน NeuroPsychopharmacology & Biological Psychiatry 2002;26: 1303 8-
- Kindlundh AM, Lindblom J, Bergstrom L, Wikberg JE, Nyberg F. anabolic-androgenic steroid nandrolone decanoate ส่งผลกระทบต่อความหนาแน่นของตัวรับโดปามีนในสมองหนูตัวผู้ วารสารประสาทวิทยาศาสตร์แห่งยุโรป 2001;13: 291 6- [PubMed]
- Kindlundh AM, Lindblom J, Nyberg F. การบริหารเรื้อรังด้วย nandrolone decanoate ทำให้เกิดการเปลี่ยนแปลงในเนื้อหายีน - การบันทึกของ dopamine D (1) - และ D (2) - ตัวรับในสมองของหนู การวิจัยสมอง 2003;979: 37 42- [PubMed]
- King BE, Packard MG, Alexander GM คุณสมบัติทางอารมณ์ของการฉีดฮอร์โมนเทสโทสเตอโรนในหนูตัวผู้ จดหมายประสาทวิทยา 1999;269: 149 52- [PubMed]
- Koob GF, Nestler EJ ชีววิทยาของการติดยาเสพติด วารสาร Neuropsychiatry & Clinical Neurosciences. 1997;9: 482 97- [PubMed]
- Kouri EM, Lukas SE, สมเด็จพระสันตะปาปา HG, Jr, Oliva PS เพิ่มการตอบสนองเชิงรุกในอาสาสมัครชายหลังจากการบริหารปริมาณฮอร์โมนเทสโทสเตอโรน การพึ่งพายาและแอลกอฮอล์ 1995;40: 73 9- [PubMed]
- Kritzer MF การผ่าตัดอวัยวะสืบพันธุ์ระยะยาวมีผลต่อความหนาแน่นของไทโรซีนไฮดรอกซีเลส - แต่ไม่ใช่โดปามีน - เบต้า - ไฮดรอกซี -, โคลีนอะเซทิลทรานเฟอเฟอเรส - หรือซอนเซโรโทนิน Cortex สมอง 2003;13: 282 296- [PubMed]
- Kurling S, Kankaanpaa A, Ellermaa S, Karila T, Seppala T. ผลของการรักษาด้วย nandrolone decanoate สำหรับโรคเรื้อรังที่มีต่อระบบประสาทของโดปามีนและเซโรโทจิกในสมองของหนู การวิจัยสมอง 2005;1044: 67 75- [PubMed]
- Lambert JJ, Belelli D, Peden DR, Vardy AW, Peters JA การปรับ Neurosteroid ของผู้รับ GABAA ความก้าวหน้าทางประสาทชีววิทยา 2003;71: 67 80- [PubMed]
- Lenroot RK, Giedd JN การพัฒนาสมองในเด็กและวัยรุ่น: ข้อมูลเชิงลึกจากการถ่ายภาพด้วยคลื่นสนามแม่เหล็กทางกายวิภาค ประสาทวิทยาศาสตร์และชีวพฤติกรรม 2006;30: 718 29-
- Lesting J, Neddens J, Teuchert-Noodt G. Ontogeny ของโดปามีนปกคลุมด้วยเส้นประสาทในนิวเคลียส accumbens ของเจอร์บิล การวิจัยสมอง 2005;1066: 16 23- [PubMed]
- Malayev A, Gibbs TT, Farb DH การยับยั้งการตอบสนองของ NMDA โดย pregnenolone ซัลเฟตเผยให้เห็นการปรับเลือกย่อยของตัวรับ NMDA โดยเตียรอยด์ซัลเฟต วารสารเภสัชวิทยาอังกฤษ. 2002;135: 901 9- [บทความฟรี PMC] [PubMed]
- Martinez M, Guillen-Salazar F, Salvador A, Simon VM การรุกรานระหว่างดวงที่ประสบความสำเร็จและความพึงพอใจของสถานที่ที่กำหนดไว้ในหนู สรีรวิทยาและพฤติกรรม. 1995;58: 323 8- [PubMed]
- ถ่อมตน LR, Romeo RD, วัค CM, Sisk CL การกระทำของเทสโทสเตอโรนในหนูแฮมสเตอร์ prepubertal และ postpubertal: การแยกตัวของผลกระทบต่อพฤติกรรมการสืบพันธุ์และสมอง ฮอร์โมนและพฤติกรรม 1997;31: 75 88-
- Meisel RL, Joppa MA การตั้งค่าสถานที่ที่กำหนดไว้ในแฮมสเตอร์หญิงตามการเผชิญหน้าที่ก้าวร้าวหรือทางเพศ สรีรวิทยาและพฤติกรรม. 1994;56: 1115 8- [PubMed]
- Melloni RH, Jr, Connor DF, Hang PT, Harrison RJ, Ferris CF การได้รับสเตียรอยด์แบบอะนาโบลิกและแอนโดรเจนในช่วงวัยรุ่นและพฤติกรรมก้าวร้าวในแฮมสเตอร์ทองคำ สรีรวิทยาและพฤติกรรม 1997;61: 359 64- [PubMed]
- Menard C, Harlan R. การควบคุมแอนโดรเจนรีแอคติวิตี้ของแอนโดรเจนในสมองของหนูด้วยแอนโดรเจนแอนโดรลิคและแอนโดรเจน การวิจัยสมอง 1993;622: 226 236- [PubMed]
- Mermelstein PG, Becker JB, Surmeier DJ Estradiol ช่วยลดกระแสแคลเซียมในเซลล์ประสาทหนูหนูผ่านทางตัวรับเมมเบรน วารสารประสาทวิทยา 1996;16: 595 604- [PubMed]
- Midgley SJ, Heather N, Davies JB ระดับความก้าวร้าวในกลุ่มผู้ใช้เตียรอยด์ anabolic-androgenic การแพทย์วิทยาศาสตร์และกฎหมาย 2001;41: 309 14-
- Molenda-Figueira HN, Salas-Ramirez KY, Schulz KM, Zehr JL, Montalto PR, Sisk CL ประสบการณ์ทางสังคมของวัยรุ่นคืนค่าพฤติกรรมอุทานผู้ใหญ่ในแฮมสเตอร์ซีเรียเพศชายที่ขาดฮอร์โมนเทสโทสเตอโรน สมาคมเพื่อระบบประสาทพฤติกรรม แปซิฟิกโกรฟ, แคลิฟอร์เนีย: 2007
- Noble RG, Alsum PB. ฮอร์โมนที่สัมพันธ์กับฮอร์โมนเพศหญิงในหนูแฮมสเตอร์สีทอง (Mesocricetus auratus) สรีรวิทยาและพฤติกรรม. 1975;14: 567 74- [PubMed]
- Nunez JL, Lauschke DM, Juraska JM การตายของเซลล์ในการพัฒนาเยื่อหุ้มสมองหลังในหนูตัวผู้และตัวเมีย วารสารประสาทวิทยาเปรียบเทียบ 2001;436: 32 41- [PubMed]
- Nunez JL, Sodhi J, Juraska JM ฮอร์โมนที่เกี่ยวกับรังไข่หลังจากวันที่ 20 หลังคลอดลดจำนวนเซลล์ประสาทในเยื่อหุ้มสมองภาพหนูหลัก วารสารชีววิทยา 2002;52: 312 21- [PubMed]
- O'Connor DB, Archer J, Wu FC ผลของฮอร์โมนเทสโทสเตอโรนต่ออารมณ์ความก้าวร้าวและพฤติกรรมทางเพศในชายหนุ่ม: การศึกษาแบบ double-blind, placebo-controlled, cross-over study วารสาร Clinical Endocrinology & Metabolism. 2004;89: 2837 45- [PubMed]
- Packard MG, Cornell AH, Alexander GM ให้รางวัลคุณสมบัติทางอารมณ์ของนิวเคลียส accumbens การฉีดฮอร์โมนเพศชาย ประสาทวิทยาศาสตร์เชิงพฤติกรรม. 1997;111: 219 24- [PubMed]
- Parfitt DB, Thompson RC, Richardson HN, Romeo RD, Sisk CL GnRH mRNA เพิ่มขึ้นกับวัยแรกรุ่นในสมองหนูแฮมสเตอร์ซีเรียเพศผู้ วารสารประสาทวิทยา 1999;11: 621 7- [PubMed]
- Parrott AC, Choi PY, Davies M. การใช้เตียรอยด์ Anabolic โดยนักกีฬาสมัครเล่น: ผลกระทบต่อสภาวะอารมณ์ทางจิตวิทยา วารสารเวชศาสตร์การกีฬาและสมรรถภาพทางกาย. 1994;34: 292 8- [PubMed]
- Patton PE, Novy MJ, Lee DM, Hickok LR การวินิจฉัยและผลการสืบพันธุ์หลังการผ่าตัดมดลูกที่สมบูรณ์, ปากมดลูกที่ซ้ำซ้อนและเยื่อบุโพรงมดลูก วารสารสูติศาสตร์และนรีเวชวิทยาอเมริกัน. 2004;190: 1669 75- 1675 8- [PubMed]
- Paus T, Collins DL, Evans AC, Leonard G, Pike B, Zijdenbos A. การสุกของสสารสีขาวในสมองของมนุษย์: การทบทวนการศึกษาด้วยคลื่นสนามแม่เหล็ก ประกาศการวิจัยสมอง 2001;54: 255 66- [PubMed]
- Perry PJ, Kutscher EC, Lund BC, Yates WR, Holman TL, Demers L. มาตรการความก้าวร้าวและการเปลี่ยนแปลงทางอารมณ์ในนักยกน้ำหนักชายที่มีและไม่มีการใช้เตียรอยด์แอนโดรโบนิกแอนโดรลิก วารสารนิติวิทยาศาสตร์. 2003;48: 646 51- [PubMed]
- ปีเตอร์ KD KD ไม้ RI การพึ่งพาแอนโดรเจนในแฮมสเตอร์: การให้ยาเกินขนาด, ความอดทน, และกลไกการเกิด opioidergic ประสาท 2005;130: 971 81- [PubMed]
- Pfaus JG, Damsma G, Nomikos GG, Wenkstern DG, Blaha CD, Phillips AG, Fibiger HC พฤติกรรมทางเพศช่วยเพิ่มการส่งโดปามีนส่วนกลางในหนูตัวผู้ การวิจัยสมอง 1990;530: 345 348- [PubMed]
- Phoenix CH, Goy RW, Gerall AA, Young WC การจัดระเบียบการกระทำของฮอร์โมนเทสโทสเตอโรนที่ได้รับการเตรียม prenatally ในเนื้อเยื่อที่เป็นสื่อกลางพฤติกรรมการผสมพันธุ์ในหนูตะเภาหญิง การศึกษาเกี่ยวกับต่อมไร้ท่อ 1959;65: 369 82- [PubMed]
- Pinos H, Collado P, Rodriguez-Zafra M, Rodriguez C, Segovia S, Guillamon A. การพัฒนาความแตกต่างทางเพศในสถานที coeruleus ของหนู ประกาศการวิจัยสมอง 2001;56: 73 8- [PubMed]
- สมเด็จพระสันตะปาปา HG, Jr, Katz DL คดีฆาตกรรมและคดีใกล้ตัวโดยผู้ใช้ anabolic steroid [ดูความคิดเห็น] วารสารคลินิกจิตเวช 1990;51: 28 31- [PubMed]
- สมเด็จพระสันตะปาปา HG, Jr, Katz DL ผลกระทบทางจิตเวชและทางการแพทย์จากการใช้เตียรอยด์ anabolic-androgenic การศึกษาควบคุมของนักกีฬา 160 จดหมายเหตุของจิตเวชทั่วไป 1994;51: 375 82- [PubMed]
- สมเด็จพระสันตะปาปา HG, Jr, Kouri EM, Powell KF, Campbell C, Katz DL การใช้เตียรอยด์ Anabolic-androgenic ในหมู่นักโทษ 133 จิตเวชที่ครอบคลุม 1996;37: 322 7- [PubMed]
- Putnam SK, Du J, Sato S, Hull EM การคืนค่าเทสโทสเตอโรนของพฤติกรรมการมีส่วนร่วมมีความสัมพันธ์กับการปลดปล่อยโดพามีนในระดับปานกลางในหนูตัวผู้ตอน ฮอร์โมนและพฤติกรรม 2001;39: 216 224- [PubMed]
- Putnam SK, Sato S, Hull EM ผลของฮอร์โมนเทสโทสเตอโรนต่อการมีเพศสัมพันธ์และการปลดปล่อยโดพามีนอยู่ตรงกลางในหนูเพศผู้ตอน ฮอร์โมนและพฤติกรรม 2003;44: 419 26- [PubMed]
- Putnam SK, Sato S, Riolo JV, Hull EM ผลของฮอร์โมนเทสโทสเตอโรนต่อการมีเพศสัมพันธ์, โดพามีนอยู่ตรงกลาง, และ NOS-immunoreactivity ในหนูเพศผู้ตอน ฮอร์โมนและพฤติกรรม 2005;47: 513 522- [PubMed]
- Rankin SL, Partlow GD, McCurdy RD, Giles ED, ฟิชเชอร์ KR neurogenesis หลังคลอดใน vasopressin และนิวเคลียสที่มี oxytocin ของหมู hypothalamus การวิจัยสมอง 2003;971: 189 96- [PubMed]
- Ricci LA, Rasakham K, Grimes JM, Melloni RH., Jr Serotonin-1A กิจกรรมของตัวรับและการแสดงออกปรับการรุกรานของสเตอรอยด์สเตียรอยด์ที่ก่อให้เกิดปฏิกิริยา anabolic / androgenic ในแฮมสเตอร์ เภสัชวิทยาชีวเคมีและพฤติกรรม 2006;85: 1 11-
- Romeo RD, Cook-Wiens E, Richardson HN, Sisk CL Dihydrotestosterone เปิดใช้งานพฤติกรรมทางเพศในแฮมสเตอร์ชายผู้ใหญ่ แต่ไม่ได้อยู่ในวัยรุ่น สรีรวิทยาและพฤติกรรม. 2001;73: 579 84- [PubMed]
- Romeo RD, Diedrich SL, Sisk CL เอสโตรเจนรีแอคทีฟอิมมูเรียติวิตี้ในหนูแฮมสเตอร์ซีเรียก่อนและหลังโตเต็มวัย จดหมายประสาทวิทยา 1999;265: 167 70- [PubMed]
- Romeo RD, Parfitt DB, Richardson HN, Sisk CL ฟีโรโมนทำให้ระดับ Fos-immunoreactivity เทียบเท่าในแฮมสเตอร์ซีเรียที่เตรียมไว้และตัวเต็มวัย ฮอร์โมนและพฤติกรรม 1998;34: 48 55- [PubMed]
- Romeo RD, Richardson HN, Sisk CL วัยแรกรุ่นและการสุกของสมองชายและพฤติกรรมทางเพศ: การหล่อหลอมศักยภาพทางพฤติกรรม ความคิดเห็นเกี่ยวกับประสาทและชีวพฤติกรรม 2002a;26: 381 91- [PubMed]
- Romeo RD, Wagner CK, Jansen HT, Diedrich SL, Sisk CL Estradiol ก่อให้เกิดตัวรับฮอร์โมนโปรเจสเตอโรน แต่ไม่ได้เปิดใช้งานพฤติกรรมการผสมพันธุ์ในแฮมสเตอร์เพศชาย (Mesocricetus auratus) ก่อนวัยแรกรุ่น ประสาทวิทยาศาสตร์เชิงพฤติกรรม. 2002b;116: 198 205- [PubMed]
- Salas-Ramirez KY, Montalto PR, Sisk CL อะนาโบลิคแอนโดรเจนเตียรอยด์ (AAS) ส่งผลกระทบต่อพฤติกรรมทางสังคมในแฮมสเตอร์ซีเรียวัยรุ่นและผู้ใหญ่ชาย ฮอร์โมนและพฤติกรรม 2008 ในการกด
- SAMHSA / OAS DHHS เอกสารเผยแพร่ (SMA) 1996 ผลสำรวจครัวเรือน 1994 แห่งชาติเรื่องการใช้ยาเสพติด pp. 1994 – 96
- SAMHSA / OAS ผลจากการสำรวจแห่งชาติ 2004 เรื่องการใช้ยาและสุขภาพ: ผลการวิจัยระดับชาติ 2005 ซีรี่ส์ NSDUH H-28, DHHS เลขที่เผยแพร่ SMA 05 – 4062
- Sato SM, Johansen J, Jordan CL, Wood RI Androgen จัดการด้วยตนเองในหนู Tfm การประชุมประจำปีครั้งที่ 10 ของสมาคมจิตวิทยาระบบประสาทพฤติกรรม.
- Sato SM, Wood RI การบริหารตนเองของสเตียรอยด์ที่ไม่สามารถซึมผ่านเยื่อบุ Anabolic-androgenic (aas) ในแฮมสเตอร์ซีเรีย การประชุมประจำปีครั้งที่ 11 ของสังคม fof ระบบประสาทพฤติกรรม
- ชโรเดอร์เจพีแพคการ์ด MG บทบาทของโดปามีนชนิดย่อยตัวรับในการได้รับการตั้งค่าฮอร์โมนเพศชายในหนู จดหมายประสาทวิทยา 2000;282: 17 20- [PubMed]
- Schulte HM, Hall MJ, Boyer M. ความรุนแรงในครอบครัวที่เกี่ยวข้องกับการใช้สเตียรอยด์ anabolic วารสารจิตเวชอเมริกัน 1993;150: 348 [PubMed]
- Schulz KM, Menard TA, Smith DA, Albers HE, Sisk CL การได้รับฮอร์โมนของลูกอัณฑะในช่วงวัยรุ่นจัดพฤติกรรมการทำเครื่องหมายด้านข้างและตัวรับ vasopressin ที่มีผลผูกพันในกะบังด้านข้าง ฮอร์โมนและพฤติกรรม 2006;50: 477 83- [PubMed]
- Schulz KM, Richardson HN, Romeo RD, Morris JA, เลคแลนด์ KJ, Sisk CL พื้นที่ preoptic ตรงกลางตอบสนองโดพามีนกับฟีโรโมนหญิงพัฒนาในช่วงวัยแรกรุ่นในหนูแฮมสเตอร์ซีเรียชาย การวิจัยสมอง 2003;988: 139 45- [PubMed]
- Schulz KM, Richardson HN, Zehr JL, Osetek AJ, Menard TA, Sisk CL ฮอร์โมน Gonadal สร้างความเข้มแข็งให้กับพฤติกรรมการสืบพันธุ์ในช่วงวัยแรกรุ่นในหนูแฮมสเตอร์ซีเรีย ฮอร์โมนและพฤติกรรม 2004;45: 242 9- [PubMed]
- Schulz KM, Sisk CL ฮอร์โมน Pubertal สมองวัยรุ่นและการพัฒนาพฤติกรรมทางสังคม: บทเรียนจากหนูแฮมสเตอร์ซีเรีย ต่อมไร้ท่อโมเลกุลและเซลล์ 2006:254–255. 120–6.
- Schulz KM, Zehr JL, Salas-Ramirez KY, Sisk CL นักวางแผนการประชุมทางประสาท Sandiego, CA: สมาคมประสาทวิทยาศาสตร์; 2007 วัยรุ่นเป็นช่วงเวลาที่อ่อนไหวเป็นครั้งที่สองสำหรับการจัดผลของเทสโทสเทอโรนต่อพฤติกรรมการสืบพันธุ์เพศชายของผู้ใหญ่ 2007 ออนไลน์
- Scott JP, Stewart JM, De Ghett VJ ช่วงเวลาที่สำคัญในการจัดระบบ จิตวิทยาพัฒนาการ 1974;7: 489 513- [PubMed]
- Shughrue PJ, Lane MV, Merchenthaler I. การเปรียบเทียบการกระจายตัวของฮอร์โมนเอสโตรเจน - อัลฟาและ -beta mRNA ในระบบประสาทส่วนกลางของหนู วารสารประสาทวิทยาเปรียบเทียบ 1997;388: 507 25- [PubMed]
- Simons-Morton BG, Haynie DL พยากรณ์ทางจิตสังคมของขั้นตอนการสูบบุหรี่ที่เพิ่มขึ้นในหมู่นักเรียนระดับประถมที่หก วารสารพฤติกรรมสุขภาพอเมริกัน 2003;27: 592 602- [PubMed]
- Sisk CL, Zehr JL. ฮอร์โมน Pubertal จัดระเบียบสมองและพฤติกรรมของวัยรุ่น พรมแดนในระบบประสาท 2005;26: 163 74- [PubMed]
- Sowell ER, Thompson PM, Leonard CM, ยินดีต้อนรับ SE, Kan E, Toga AW การทำแผนที่ระยะยาวของความหนาของเยื่อหุ้มสมองและการเติบโตของสมองในเด็กปกติ วารสารประสาทวิทยา 2004;24: 8223 31- [PubMed]
- Sowell ER, Thompson PM, Tessner KD, Toga AW การทำแผนที่การเติบโตของสมองอย่างต่อเนื่องและการลดความหนาแน่นของสสารสีเทาในเยื่อหุ้มสมองส่วนหน้าหลัง: ความสัมพันธ์แบบผกผันระหว่างการเจริญเติบโตของสมองหลังวัยหมดประจำเดือน วารสารประสาทวิทยา 2001;21: 8819 29- [PubMed]
- หอก LP สมองวัยรุ่นและอาการทางพฤติกรรมที่เกี่ยวข้องกับอายุ ประสาทวิทยาศาสตร์และชีวพฤติกรรม 2000;24: 417 63-
- Su TP, Pagliaro M, Schmidt PJ, Pickar D, Wolkowitz O, Rubinow DR ผลทางประสาทวิทยาของสเตียรอยด์อะนาโบลิกในอาสาสมัครปกติชาย. JAMA 1993;269: 2760 4- [PubMed]
- Thiblin I, Finn A, Ross SB, Stenfors C เพิ่มกิจกรรม dopaminergic และ 5-hydroxytryptaminergic ในสมองของหนูตัวผู้หลังจากการรักษาระยะยาวด้วยสเตียรอยด์แอนโบลิกและแอนโดรเจน วารสารเภสัชวิทยาอังกฤษ. 1999;126: 1301 6- [บทความฟรี PMC] [PubMed]
- Thomas P, Dressing G, Pang Y, Berg H, Tubbs C, Benninghoff A, Doughty K. Progestin, ฮอร์โมนเอสโตรเจนและแอนโดรเจน G-protein ควบคู่กับตัวรับคู่ในอวัยวะสืบพันธุ์ปลา เตียรอยด์ 2006;71: 310 6- [PubMed]
- Tricker R, Casaburi R, Storer TW, Clevenger B, Berman N, Shirazi A, Bhasin S. ผลของการใช้ฮอร์โมนเทสโทสเตอโรนในปริมาณที่ไม่เหมาะสมต่อพฤติกรรมโกรธในผู้ชายที่มีสุขภาพดี - การศึกษาของศูนย์วิจัยทางคลินิก วารสาร Clinical Endocrinology & Metabolism. 1996;81: 3754 8- [PubMed]
- Triemstra JL, Nagatani S, Wood RI ตัวบ่งชี้ทางเคมีเป็นสิ่งจำเป็นสำหรับการปลดปล่อยโดปามีนที่เกิดจากการผสมพันธุ์ใน MPOA ของแฮมสเตอร์ซีเรียเพศผู้ Neuropsychopharmacology 2005;30: 1436 42- [PubMed]
- Triemstra JL, Sato SM, Wood RI เทสโทสเตอโรนและนิวเคลียสมีโดปามีนในหนูแฮมสเตอร์ซีเรียเพศผู้ Psychoneuroendocrinology (ในการกด)
- Van Eenoo P, Delbeke FT ความชุกของยาสลบในแฟลนเดอร์สเมื่อเปรียบเทียบกับความชุกของยาสลบในกีฬาระหว่างประเทศ วารสารนานาชาติเวชศาสตร์การกีฬา 2003;24: 565 570- [PubMed]
- WADA ผลการวิเคราะห์เชิงลบรายงานโดยห้องปฏิบัติการที่ได้รับการรับรอง 2006. http://www.wada-ama.org.
- Wesson DW, McGinnis MY การสะสมแอนโบลิคแอนโดรเจนและสเตียรอยด์ (AAS) ในช่วงวัยแรกรุ่นในหนู: การประเมินระบบประสาทและพฤติกรรม เภสัชวิทยาชีวเคมีและพฤติกรรม 2006;83: 410 9-
- Wichstrom L, Pedersen W. การใช้สเตียรอยด์แอนโดรโบลิกและแอนโดรเจนในวัยรุ่น: ชนะดูดีหรือไม่ดี? วารสารการศึกษาเกี่ยวกับแอลกอฮอล์ 2001;62: 5 13- [PubMed]
- Wood RI, จอห์นสัน LR, Chu L, Schad C, DW ตนเอง การเสริมฮอร์โมนเทสโทสเตอโรน: การจัดการตนเองทางหลอดเลือดดำและ intracerebroventricular ในหนูและหนูแฮมสเตอร์ เภสัช 2004;171: 298 305- [PubMed]
- Wood RI, Newman SW ตัวรับ Androgen และเอสโตรเจนอยู่ร่วมกับเซลล์ประสาทส่วนบุคคลในสมองของหนูแฮมสเตอร์ซีเรีย neuroendocrinology 1995;62: 487 97- [PubMed]
- Wood RI, Swann JM การรวมกันของเซลล์ประสาทของสัญญาณทางเคมีและฮอร์โมนที่ควบคุมพฤติกรรมทางเพศของผู้ชาย ใน: Wallen K, Schneider JS, บรรณาธิการ การสืบพันธุ์ในบริบท กด MIT; เคมบริดจ์: 1999 pp. 423 – 444
- Zahm DS, Heimer L. สองวิถี transpallidal ที่เกิดขึ้นในนิวเคลียสหนู วารสารประสาทวิทยาเปรียบเทียบ 1990;302: 437 46- [PubMed]