 Fabrizio Sanna1*,
 Jessica Bratzu1,
 Maria A. Piludu2,
 Maria G. Corda2,
 Maria R. Melis1,
 Osvaldo Giorgi2 และ
 อันโตนิโอ1,3
- 1ภาควิชาวิทยาศาสตร์ชีวการแพทย์, แผนกประสาทวิทยาและเภสัชวิทยาคลินิก, และศูนย์ความเป็นเลิศด้านชีววิทยาของการเสพติด, มหาวิทยาลัย Cagliari, กาลยารี, อิตาลี
- 2ภาควิชาวิทยาศาสตร์สิ่งมีชีวิตและสิ่งแวดล้อม, แผนกเภสัชศาสตร์, เภสัชวิทยาและวิทยาศาสตร์เภสัชศาสตร์, มหาวิทยาลัย Cagliari, Cagliari, อิตาลี
- 3สถาบันประสาท, สภาวิจัยแห่งชาติ, แผนกกาลยารี, Cittadella Universitaria, กาลยารี, อิตาลี
Roman High- (RHA) และ Low-Avoidance (RLA) outbred rats ซึ่งแตกต่างกันไปตามลำดับอย่างรวดเร็วเมื่อเทียบกับการได้มาซึ่งการตอบสนองต่อการหลีกเลี่ยงการใช้งานที่ไม่ดีในกล่องกระสวยแสดงความแตกต่างในกิจกรรมทางเพศ หนูหญิงเปิดกว้าง อันที่จริงหนู RHA แสดงระดับของแรงจูงใจทางเพศและการมีเพศสัมพันธ์สูงกว่าหนู RLA ซึ่งยังคงมีอยู่หลังจากกิจกรรมทางเพศซ้ำ ๆ ความแตกต่างเหล่านี้มีความสัมพันธ์กับระดับเสียงที่สูงขึ้นของระบบ dopaminergic mesolimbic ของหนู RHA เทียบกับหนู RLA เปิดเผยโดยการเพิ่มขึ้นของโดปามีนที่พบใน dialysate ที่ได้รับจากนิวเคลียส accumbens ของ RHA มากกว่าหนู RLA ในช่วงกิจกรรมทางเพศ งานนี้แสดงให้เห็นว่าโดปามีนนอกเซลล์และนอเรนดาลีน (NA) นอกเซลล์เพิ่มขึ้นใน dialysate จากเยื่อหุ้มสมอง prefrontal cortex (mPFC) ที่อยู่ตรงกลางของหนู RHA และ RLA เพศชายวางต่อหน้าหนูเพศเมียที่ไม่สามารถเข้าถึงได้ การเพิ่มขึ้นของโดปามีน (และเมตาโบไลต์หลัก 3,4-dihydroxyphenylacetic acid, DOPAC) และ NA นั้นพบได้ในสัตว์ที่ไร้สมรรถภาพทางเพศและสัตว์ที่มีประสบการณ์ แต่พวกมันสูงกว่า: (i) ใน RHA มากกว่าหนู RLA; และ (ii) ในหนูที่มีประสบการณ์ทางเพศสัมพันธ์ของ RHA และ RLA มากกว่าหนูที่ไร้เดียงสาของพวกเขา ในที่สุดความแตกต่างของโดปามีนและ NA ใน mPFC นั้นเกิดขึ้นพร้อมกันกับกิจกรรมทางเพศเนื่องจากหนู RHA แสดงระดับของแรงจูงใจทางเพศและการมีเพศสัมพันธ์ในระดับที่สูงกว่าหนู RLA ทั้งในเพศและสภาพที่มีประสบการณ์ ผลลัพธ์เหล่านี้ชี้ให้เห็นว่าเสียงโดปามีนที่สูงขึ้นนั้นเกิดขึ้นใน mPFC พร้อมกับเสียงนอร์ดเรนเนอร์จิคที่เพิ่มขึ้นซึ่งอาจมีส่วนร่วมในรูปแบบ copulatory ต่างๆที่พบในหนู RHA และ RLA
บทนำ
โรมันหนูสูง - (RHA) และเส้นหลีกเลี่ยง (RLA) outbred หนูสายเดิมเลือกอย่างรวดเร็วตามลำดับเมื่อเทียบกับการเข้าซื้อกิจการที่ไม่ดีของการตอบสนองการหลีกเลี่ยงการใช้งานในกล่องกระสวย (Bignami, 1965; Broadhurst และ Bignami, 1965; Driscoll และBättig, 1982; Fernández-Teruel และคณะ, 2002; Giorgi et al., 2007) แสดงความแตกต่างอย่างมีนัยสำคัญในกิจกรรมทางเพศเมื่อมีหนูเพศเมียเปิดกว้าง อันที่จริงแล้วหนู RHA แสดงแรงจูงใจทางเพศในระดับที่สูงกว่าหนู RLA ที่ได้รับการเปิดเผยจากจำนวนอวัยวะเพศชายที่ไม่แสดงการสัมผัสอวัยวะเพศสัมพันธ์ที่แสดงโดยหนูเหล่านี้เมื่อใส่ตัวเมียที่ไม่สามารถเข้าถึงได้และการแสดงร่วมที่ดีกว่าหนู RLA โดยความแตกต่างอย่างมีนัยสำคัญในพารามิเตอร์ copulatory จำนวนมากที่พบส่วนใหญ่ในการทดสอบ copulatory ครั้งแรกระหว่างสองสายหนู แต่ยังหลังจากห้าการทดสอบ copulatory แม้ว่าลดทอน (Sanna และคณะ, 2014a) ในบรรดาความแตกต่างที่เด่นชัดที่สุดที่พบระหว่างหนู RHA และ RLA คือเปอร์เซ็นต์ของหนูที่เริ่มต้นการติดตั้งและ intromitting และอุทานในการทดสอบ copulatory ครั้งแรก, 80% ของหนู RHA เทียบกับหนู 40% ของ RLA ตามลำดับ (Sanna และคณะ, 2014a) หลักฐานการทดลองขนาดใหญ่แสดงให้เห็นว่าน้ำย่อยที่มีหน้าที่แตกต่างกันมีส่วนร่วมในความแตกต่างระหว่าง RHA และ RLA หนู ในความเป็นจริงรูปแบบ copulatory ที่แตกต่างกันของ RHA และ RLA หนูถูกพบว่ามีการแก้ไขแตกต่างกันโดย apomorphine, ผสม D1 / D2 ตัวรับโดปามีน agonist บริหารงานในปริมาณที่อำนวยความสะดวกพฤติกรรมทางเพศและ haloperidol, D2 dopamine receptor antagonist ปริมาณต่ำที่ยับยั้งพฤติกรรมทางเพศ (Sanna และคณะ, 2014b) ดังนั้นพบว่าหนู RLA มีความไวต่อการอำนวยความสะดวกและการยับยั้งพฤติกรรมทางเพศที่เกิดจาก apomorphine และ haloperidol ตามลำดับซึ่งแสดงให้เห็นถึงการปรับเปลี่ยนที่มากขึ้นของยาสองตัวส่วนใหญ่เมื่อได้รับยาในปริมาณต่ำในพารามิเตอร์ copulatory ต่างๆ หนู RLA ด้วยความเคารพหนู RHA (Sanna และคณะ, 2014b) บางทีอาจมีความสำคัญมากกว่าสำหรับการศึกษานี้รูปแบบ copulatory ที่แตกต่างกันของ RHA และ RLA หนูยังเกี่ยวข้องกับความแตกต่างในกิจกรรมของเซลล์ประสาท dopaminergic mesolimbic ซึ่งกิจกรรมเป็นที่รู้จักกันดีในการเพิ่มพฤติกรรมทางเพศ (Pfaus et al., 1990; Pleim et al., 1990; Pfaus และ Phillips, 1991; Damsma et al., 1992; Wenkstern และคณะ, 1993; Balfour et al., 2004; Pitchers และคณะ, 2010, 2013; เบโลอาเตและคณะ 2016) อันที่จริงแล้วทั้งๆที่หนูที่ไร้สมรรถภาพทางเพศและมีประสบการณ์ทางเพศ RHA และ RLA หนูมีค่าฐานที่คล้ายกันของ extracellular dopamine ใน dialysate จากนิวเคลียส accumbens, ความเข้มข้นของ dopamine extracellular และ 3,4-dihydroxyphenylacetic acid (DOPAC) ) พบว่ามีการเพิ่มขึ้นแตกต่างกันใน dialysates ที่ได้รับจากนิวเคลียส accumbens เปลือกของหนูที่ไร้เดียงสาและมีประสบการณ์ทางเพศ RHA และ RLA หนูทั้งในระยะที่คาดการณ์และบริโภคของพฤติกรรมทางเพศ ความแตกต่างดังกล่าวข้างต้นมีความชัดเจนมากขึ้นระหว่างหนูที่มีเชื้อเอชไอวีและหนู RLA แต่ยังคงมีอยู่ระหว่างหนูที่มีประสบการณ์ทางเพศกับหนูอาร์เอชเอและอาร์แอลเอแม้ว่าจะมีแนวโน้มลดลงในหนูเหล่านี้Sanna และคณะ, 2015).
บทบาทเชิงหน้าที่ของการเพิ่มขึ้นของกิจกรรมโดปามีนในนิวเคลียสแอคคัมเบนส์ที่พบเห็นได้ในระหว่างกิจกรรมทางเพศ (ไม่ว่าจะเป็นในระยะกระตุ้นหรือระยะสำเร็จของพฤติกรรมทางเพศ) ยังคงเป็นเรื่องที่ถกเถียงกันอยู่ เช่นเดียวกับที่พบเห็นได้ในระหว่างการรับประทานอาหาร ซึ่งเช่นเดียวกับกิจกรรมทางเพศ มีแรงจูงใจที่สำคัญอย่างยิ่ง ดังนั้น แม้ว่าโดปามีนในนิวเคลียสแอคคัมเบนส์จะมีส่วนเกี่ยวข้องกับแรงจูงใจ และเซลล์ประสาทโดปามีนในระบบเมโซลิมบิกมักถูกเรียกว่าเซลล์ประสาทที่ให้รางวัล แต่ในช่วง 15 ปีที่ผ่านมา การศึกษาล่าสุดสนับสนุนสมมติฐานที่ว่าโดปามีนในระบบเมโซลิมบิกไม่ได้มีส่วนเกี่ยวข้องกับการแสดงออกหลักของพฤติกรรมที่มีแรงจูงใจหรือให้รางวัล แต่เกี่ยวข้องกับการเรียนรู้และความจำของความสัมพันธ์ระหว่างสิ่งเร้าและรางวัล ( Agmo et al., 1995 ; Berridge and Robinson, 1998 ; Ikemoto and Panksepp, 1999; Pitchers et al., 2013 , 2014 ; Beloate et al., 2016 ; Salamone et al., 2016 ) สอดคล้องกับสมมติฐานนี้ การปิดกั้นตัวรับโดปามีนในนิวเคลียสแอคคัมเบนส์หรือการปิดใช้งานเซลล์ประสาทโดปามีนในบริเวณเวนทรัลเทกเมนทัลนั้น เพิ่งถูกค้นพบว่าไม่สามารถเปลี่ยนแปลงการแสดงออกของลักษณะความอยากและความพึงพอใจในพฤติกรรมการผสมพันธุ์ในหนูตัวผู้ได้ ( Pitchers et al., 2013 , 2014 ; Beloate et al., 2016 )
อย่างไรก็ตามบทบาทของพื้นที่สมองอื่น ๆ ที่มีโดปามีนในพฤติกรรมทางเพศที่แตกต่างกันระหว่าง RHA และ RLA ไม่สามารถตัดออกได้ ดังนั้นจึงเป็นที่ทราบกันดีว่าโดปามีนมีผลในการอำนวยความสะดวกต่อขั้นตอนการคาดการณ์และการบริโภคของพฤติกรรมทางเพศในสัตว์ทดลองและในมนุษย์ไม่เพียง แต่ในนิวเคลียส accumbens (Everitt, 1990; Pfaus et al., 1990; ฮัลล์และอัล 1991; Pfaus และ Everitt, 1995; Melis และ Argiolas, 2011) แต่ยังอยู่ในพื้นที่สมองอื่น ๆ เช่นพื้นที่ preoptic อยู่ตรงกลาง, มลรัฐและนิวเคลียสของมัน (เช่นนิวเคลียส paraventricular (PVN); Pfaus และ Phillips, 1991; Argiolas and Melis, 1995, 2005, 2013; ฮัลล์และอัล 1995, 1999; Melis และ Argiolas, 1995; Melis et al., 2003; Succu et al., 2007; Pfaus, 2010) อีกพื้นที่ที่มีโดปามีนและอาจมีบทบาทในพฤติกรรมทางเพศก็คือเยื่อหุ้มสมอง prefrontal cortex (mPFC; Fernández-Guasti และคณะ, 1994; Agmo และ Villalpando, 1995; Agmo et al., 1995; Hernández-Gonzáles et al., 1998, 2007; Kakeyama และคณะ, 2003; Balfour et al., 2006; Afonso et al., 2007; Davis et al., 2010; Febo, 2011) ในความเป็นจริงในพื้นที่สมองนี้จะพบปลายประสาทของเซลล์ประสาทโดปามีน mesocortical กับร่างกายเซลล์ของพวกเขาในพื้นที่ tegmental หน้าท้องเป็นเซลล์ประสาทโดปามีน mesolimbic สำหรับนิวเคลียส accumbens บทบาทที่แน่นอนของพื้นที่สมองนี้ในพฤติกรรมทางเพศอยู่ไกลจากความชัดเจน ที่จริงแล้วรอยโรคของ mPFC นั้นมักจะไม่สามารถเปลี่ยนพฤติกรรมทางเพศของหนูเพศผู้กับเพศหญิงที่รับได้ทางเพศ (Fernández-Guasti และคณะ, 1994; Agmo และ Villalpando, 1995; Agmo et al., 1995; Hernández-Gonzáles et al., 1998, 2007; Kakeyama และคณะ, 2003; Balfour et al., 2006; Afonso et al., 2007) และการแสดงออกของการตั้งค่าสถานที่ปรับอากาศสำหรับรางวัลทางเพศ (Davis et al., 2010) อย่างไรก็ตามแผล mPFC ซึ่งไม่ได้เปลี่ยนรูปลักษณ์ของสถานที่ที่กำหนดไว้สำหรับรางวัลทางเพศยกเลิกในสัตว์เดียวกันความสามารถในการสร้างความเกลียดชังปรับอากาศต่อกิจกรรมทางเพศเมื่อจับคู่กับสิ่งเร้า aversive (Davis et al., 2010) และเซลล์ที่เลือกสรรในระหว่างการเข้าใกล้พฤติกรรมของหนูตัวผู้ที่มีต่อเพศหญิงที่ไม่สามารถเข้าถึงได้ถูกวัดใน mPFC ของหนูตัวผู้ (Febo, 2011) การค้นพบนี้นำไปสู่การแนะนำว่าการกระตุ้น mPFC ในระหว่างพฤติกรรมทางเพศมีบทบาทในการบูรณาการข้อมูลภายนอกและภายในสำหรับการดำเนินการและการควบคุมพฤติกรรมมุ่งเป้าหมายมากกว่าการแสดงออกของการตอบสนองโดยธรรมชาติต่อผู้สนับสนุนทางธรรมชาติ ไปที่และเกรซ 2005) ดังนั้นร่วมกับนิวเคลียส accumbens, mPFC เป็นส่วนหนึ่งของระบบประสาทที่ซับซ้อนที่เกี่ยวข้องในการปรับพฤติกรรมกระตุ้น (พฤติกรรมเป้าหมายกำกับ) ซึ่งต้องมีการบูรณาการข้อมูลความรู้จาก mPFC ข้อมูลทางอารมณ์จาก amygdala และบริบท - ข้อมูลที่เกี่ยวข้องจากฮิบโปแคมปัสในนิวเคลียส accumbens (ไปที่และเกรซ 2005).
หลักฐานจากการทดลองชี้ให้เห็นว่าการปล่อยโดปามีนใน mPFC มีส่วนเกี่ยวข้องกับการควบคุมพฤติกรรมที่เกิดจากแรงจูงใจ และการทำงานที่ผิดปกติของกลไกเหล่านี้เชื่อว่ามีบทบาทในสภาวะทางพยาธิวิทยาหรือการปรับตัวที่ไม่เหมาะสม เช่น โรคทางจิตเวช เช่น โรคจิตเภท โรคสมาธิสั้นและอยู่ไม่นิ่ง (ADHD) โรคซึมเศร้า ( Dunlop and Nemeroff, 2007 ; Masana et al., 2011 ) หรือการใช้สารเสพติดและพฤติกรรมการพนัน ( Everitt and Robbins, 2005 ) ที่น่าสนใจคือ กิจกรรมของโดปามีนที่ถูกปล่อยออกมาใน mPFC อาจได้รับอิทธิพลจากนอร์อะดรีนาลีน (NA) ซึ่งมีอยู่ใน mPFC ในระดับที่สูงกว่าโดปามีน และโดยเฉพาะอย่างยิ่งจากตัวขนส่ง NA (NET) ซึ่งไม่เพียงแต่มีปริมาณมากกว่าตัวขนส่งโดปามีน (DAT) ใน mPFC เท่านั้น ( Carboni et al., 1990 , 2006 ; Gresch et al., 1995 ; Westernik et al., 1998 ) แต่ยังแสดงความสัมพันธ์กับโดปามีนสูงกว่าความสัมพันธ์กับ NA อีกด้วย ( Horn, 1973 ) เนื่องจากโดปามีนและนอร์เอพิเนฟรินมักทำงานร่วมกันในหลายหน้าที่ของ mPFC ตั้งแต่ความจำใช้งานและการสร้างและการเปลี่ยนชุดความสนใจ ไปจนถึงการเรียนรู้แบบย้อนกลับ การยับยั้งการตอบสนอง และการตอบสนองต่อความเครียด (ดูRobbins และ Arnsten, 2009 ) จึงทำให้เกิดความเป็นไปได้ว่าโดปามีนเพียงอย่างเดียวหรือร่วมกับนอร์เอพิเนฟรินใน mPFC อาจมีบทบาทในความแตกต่างทางพฤติกรรมระหว่างหนู RHA และ RLA รวมถึงความแตกต่างที่พบในพฤติกรรมทางเพศด้วย
เพื่อทดสอบสมมติฐานนี้กิจกรรมของระบบ dopaminergic mesocortical และของระบบ noradrenergic ใน mPFC ได้ถูกศึกษาใน RHA และ RLA หนูสองสายโดยวิธีการ intracerebral microdialysis โดยย่อ dopamine (และ metabolite หลัก DOPAC) และ NA วัดใน dialysates ที่ได้รับจาก prelimbic (PrL) และ infralimbic (IL) ช่องของ mPFC ของเพศที่ไร้เดียงสา (เช่นไม่เคยสัมผัสกับผู้หญิงที่อ่อนไหว) และ RHA ที่มีเพศสัมพันธ์ หนู RLA (เช่นที่ผ่านการทดสอบการมีเพศสัมพันธ์เบื้องต้นห้าครั้งและแสดงระดับของกิจกรรม copulatory อย่างต่อเนื่อง) เมื่ออยู่ในที่ที่ไม่สามารถเข้าถึงตัวเมียได้และในระหว่างการมีเพศสัมพันธ์โดยตรงโดยโครมาโทกราฟีของเหลวความดันสูง
วัสดุและวิธีการ
สัตว์
หนูแรทเพศผู้สายพันธุ์ RHA และ RLA ที่ไม่ได้ผสมพันธุ์กันเอง ( N = 30 สำหรับแต่ละสายพันธุ์ โดยมีน้ำหนักประมาณ 300 กรัมเมื่อเริ่มต้นการทดลอง) ทั้งหมดมาจากฝูงหนูที่ก่อตั้งขึ้นในปี 1998 ที่มหาวิทยาลัยคาลยารี ประเทศอิตาลี ( Giorgi et al., 2007 ) ขั้นตอนที่ใช้สำหรับการผสมพันธุ์แบบคัดเลือกของฝูงหนูในซาร์ดิเนียได้มีการอธิบายไว้โดยละเอียดแล้ว ( Giorgi et al., 2005 )
หนูแรทเพศเมียสายพันธุ์ SD ที่ถูกตัดรังไข่ (น้ำหนัก 250–300 กรัม ณ จุดเริ่มต้นของการทดลอง) ที่ใช้ในการทดลองทั้งหมด ได้รับมาจากบริษัท Envigo (San Pietro al Natisone ประเทศอิตาลี) สัตว์ทดลองถูกปรับสภาพในกรง (38 ซม. × 60 ซม. × 20 ซม.) กรงละ 4 ตัว ในสถานที่เลี้ยงสัตว์ทดลองของภาควิชาวิทยาศาสตร์ชีวการแพทย์ มหาวิทยาลัยคาลิอารี เป็นเวลาอย่างน้อย 10 วันก่อนเริ่มการทดลอง ที่อุณหภูมิ 24°C ความชื้น 60% วงจรแสง/มืด 12 ชั่วโมงแบบกลับด้าน (ปิดไฟตั้งแต่ 08:00 น. ถึง 20:00 น.) และมีน้ำและอาหารมาตรฐานสำหรับสัตว์ทดลองให้กินได้ตามต้องการมีการจับต้องสัตว์ทดลองวันละ 1-2 นาที ตลอดช่วงเวลาการปรับสภาพ เพื่อลดความเครียดจากการจับต้องระหว่างการทดลอง นอกจากนี้ การติดต่อกับเจ้าหน้าที่ดูแลสัตว์ทดลองถูกจำกัดไว้เพียงผู้ดูแลคนเดียว และวัสดุรองนอนในกรงจะไม่ถูกเปลี่ยนทั้งในวันก่อนหรือในวันทำการทดลอง การทดลองทั้งหมดดำเนินการระหว่างเวลา 10:00 น. ถึง 18:00 น. การศึกษานี้ดำเนินการตามคำแนะนำของแนวทางปฏิบัติของประชาคมยุโรป คำสั่งลงวันที่ 22 กันยายน 2010 (2010/63/EU) และกฎหมายของอิตาลี (DL ลงวันที่ 4 มีนาคม 2014 เลขที่ 26) โปรโตคอลได้รับการอนุมัติจากคณะกรรมการจริยธรรมสำหรับการทดลองในสัตว์ของมหาวิทยาลัยคาลยารี (หนังสืออนุญาตเลขที่ 361/2016-PR ลงวันที่ 8 เมษายน 2016 ถึง FS)
กลุ่มทดลอง
ใช้หนู RHA และ RLA เพศผู้ที่ยังไม่เคยมีเพศสัมพันธ์และเคยมีเพศสัมพันธ์แล้ว หนูที่ยังไม่เคยมีเพศสัมพันธ์คือหนูที่ไม่เคยสัมผัสกับหนูเพศเมียที่พร้อมผสมพันธุ์ (ถูกตัดรังไข่และได้รับการกระตุ้นด้วยเอสตราไดออลและโปรเจสเตอโรน) ส่วนหนูที่เคยมีเพศสัมพันธ์แล้วคือหนูที่เคยผ่านการทดสอบการผสมพันธุ์ติดต่อกัน 5 ครั้ง ครั้งละ 60 นาที โดยเว้นระยะห่าง 3 วัน กับหนูเพศเมียที่พร้อมผสมพันธุ์ ( Sanna et al., 2014a , b ) หนูเพศเมียถูกกระตุ้นให้เป็นสัดโดยการฉีดเอสตราไดออลเบนโซเอต (200 ไมโครกรัม/ตัว ในน้ำมันถั่วลิสง) และโปรเจสเตอโรน (0.5 มิลลิกรัม/ตัว ในน้ำมันถั่วลิสง) ใต้ผิวหนัง 48 ชั่วโมงและ 6 ชั่วโมงก่อนการทดสอบการผสมพันธุ์ตามลำดับ ตรวจสอบการเป็นสัดโดยการย้อมสี May-Grunwald-Giemsa และการตรวจด้วยกล้องจุลทรรศน์ของสารคัดหลั่งจากช่องคลอด 1 ชั่วโมงก่อนการทดลอง จากการศึกษาครั้งนี้ สอดคล้องกับการศึกษาครั้งก่อนๆ ( Sanna et al., 2014a , b , 2015 ) พบว่าการทดสอบการผสมพันธุ์เบื้องต้น 5 ครั้งนั้นเพียงพอที่จะทำให้หนูโรมันตัวผู้ทั้งสองสายพันธุ์แสดงระดับกิจกรรมการผสมพันธุ์ที่คงที่ เช่น หนู RHA และ RLA ที่มีประสบการณ์ทางเพศแล้วจะต้องผ่านเกณฑ์การหลั่งน้ำอสุจิอย่างน้อยหนึ่งครั้งในการทดสอบสองครั้งสุดท้าย (หนู RHA หนึ่งตัวและหนู RLA สองตัวที่ไม่ผ่านเกณฑ์นี้จะถูกคัดออกในขั้นตอนนี้) สองวันหลังจากการทดสอบการผสมพันธุ์เบื้องต้นเหล่านี้ หนูโรมันที่มีประสบการณ์ทางเพศแล้วจะได้รับการผ่าตัดแบบสเตอริโอแท็กซิกเพื่อฝังโพรบไมโครไดอะไลซิสใน mPFC ดังที่อธิบายไว้ด้านล่าง ( Sanna et al., 2015 )
microdialysis ใน mPFC ระหว่างพฤติกรรมทางเพศ
ก่อนการทำไมโครไดอะไลซิสหนึ่งวัน หนู RHA และ RLA ที่ยังไม่เคยมีเพศสัมพันธ์หรือเคยมีเพศสัมพันธ์มาแล้ว จะถูกจัดวางในเครื่องมือสเตอริโอแท็กซิก (Stoelting Co., Wood Dale, IL, USA) ภายใต้การดมยาสลบด้วยไอโซฟลูเรน (1.5%–2%; Harvard Apparatus, Holliston, MA, USA) และฝังโพรบไมโครไดอะไลซิสแบบทำเองในแนวตั้ง (เยื่อไดอะไลซิสมีพื้นที่ผิวอิสระประมาณ 3 มม.; Melis et al., 2003 ) โดยให้โพรบชี้ไปยังบริเวณ mPFC, PrL และ IL เพียงด้านเดียว (พิกัด: 3.0 มม. ด้านหน้าและ 0.7 มม. ด้านข้างของเบรกมา และ 5.5 มม. ด้านล่างของดูรา; Paxinos and Watson, 2004 ) ในวันที่ทำการทดลอง สัตว์ทดลองถูกย้ายไปยังกรงผสมพันธุ์ (45 ซม. × 30 ซม. × 24 ซม.) ในช่วงเวลากลางคืนของวงจรชีวิต โดยกรงนี้ตั้งอยู่ในห้องเก็บเสียงที่มีแสงสีแดงสลัว และภายในกรงมีกรงพลาสติกใสขนาดเล็กอีกกรงหนึ่ง (15 ซม. × 15 ซม. × 15 ซม.) ที่มีรู 25 รู (เส้นผ่านศูนย์กลาง 2 มม.) อยู่ที่ผนังด้านแนวตั้ง เพื่อให้สัตว์ทดลองสามารถมองเห็น ดมกลิ่น และได้ยินเสียง แต่ไม่ใช่การโต้ตอบโดยตรง หลังจากช่วงเวลาปรับตัว 2 ชั่วโมง หัววัดไมโครไดอะไลซิสถูกเชื่อมต่อกับปั๊มไมโครอินฟิวชั่น CMA/100 (Harvard Apparatus, Holliston, MA, USA) ด้วยท่อโพลีเอทิลีน และทำการป้อนสารละลายริงเกอร์ (147 mM NaCl, 3 mM KCl และ 1.2 mM CaCl2 , pH 6.5) ด้วยอัตราการไหล 2.5 μl/min หลังจากปรับสมดุลของสารละลายในหลอดทดลองกับของเหลวภายนอกเซลล์เป็นเวลา 2 ชั่วโมงแล้ว จะทำการเก็บตัวอย่างสารละลายไดอะไลเซตปริมาณ 37.5 ไมโครลิตรทุกๆ 15 นาทีในระหว่างการทดลอง โดยใช้หลอดโพลีเอทิลีนที่แช่เย็นด้วยน้ำแข็ง เพื่อวัดความเข้มข้นของโดปามีน, DOPAC และ NA ดังที่อธิบายไว้ด้านล่าง หลังจากเก็บตัวอย่างสารละลายไดอะไลเซตอย่างน้อยสี่ตัวอย่างแล้ว จะนำหนูตัวเมียที่พร้อมผสมพันธุ์เข้าไปในกรงเล็กที่อยู่ภายในกรงผสมพันธุ์เป็นเวลา 30 นาที ในระหว่าง 30 นาทีนี้ จะเก็บตัวอย่างสารละลายไดอะไลเซตอีกสองตัวอย่าง ในสภาวะเช่นนี้ หนูตัวผู้ไม่สามารถมีปฏิสัมพันธ์โดยตรงกับหนูตัวเมียได้ แต่จะแสดงอาการแข็งตัวของอวัยวะเพศโดยไม่สัมผัส (ดูด้านล่าง) หลังจากนั้น จะนำกรงเล็กออก ปล่อยให้ผสมพันธุ์กันเป็นเวลา 75 นาที และเก็บตัวอย่างสารละลายไดอะไลเซตอีกห้าตัวอย่าง เมื่อสิ้นสุดช่วงเวลานี้ ตัวเมียจะถูกนำออกจากกรงผสมพันธุ์ และเก็บตัวอย่างของเหลวที่ได้จากการฟอกไตเพิ่มเติม ( Pfaus และ Everitt, 1995 ; Melis et al., 2003 ; Sanna et al., 2015 ) พารามิเตอร์ทางเพศที่เกี่ยวข้องกับระยะการเตรียมตัวและการเสร็จสิ้นของพฤติกรรมทางเพศจะถูกบันทึกไว้ตลอดการทดลอง (ดูด้านล่าง)
พฤติกรรมทางเพศ
ตลอดการทดลอง ผู้สังเกตการณ์ที่ไม่ทราบเงื่อนไขการทดลองเฉพาะเจาะจง เช่น ไม่ทราบสายพันธุ์และระดับประสบการณ์ทางเพศของสัตว์ที่ใช้ในการทดลองนั้น ได้บันทึกพารามิเตอร์หลายประการเกี่ยวกับแรงจูงใจทางเพศและประสิทธิภาพการผสมพันธุ์ที่เกี่ยวข้องกับระยะการเตรียมตัวและการสำเร็จของพฤติกรรมทางเพศ (ดูด้านล่าง) โดยสรุปคือ บันทึกระยะเวลาจนถึงการแข็งตัวของอวัยวะเพศโดยไม่สัมผัสครั้งแรก (NCPEL ซึ่งจับเวลาตั้งแต่การนำตัวเมียที่พร้อมผสมพันธุ์เข้าไปในกรงเล็กด้านใน) และความถี่ของการแข็งตัวของอวัยวะเพศโดยไม่สัมผัส (NCPEF จำนวนครั้งของการแข็งตัวของอวัยวะเพศโดยไม่สัมผัสที่เกิดขึ้นในช่วงเวลาที่ตัวเมียอยู่ในกรงด้านใน) การแข็งตัวของอวัยวะเพศที่เกิดจากฟีโรโมนนี้ ซึ่งเกิดขึ้นในหนูตัวผู้ที่มีศักยภาพทางเพศเมื่อมีตัวเมียที่พร้อมผสมพันธุ์อยู่แต่เข้าถึงไม่ได้ ถือเป็นดัชนีสำคัญของการกระตุ้นทางเพศ ( Sachs et al., 1994 ; Sachs, 2000 ; Melis et al., 2003 ) เมื่ออนุญาตให้มีการปฏิสัมพันธ์ทางเพศ เช่น ระหว่างการผสมพันธุ์ จะมีการบันทึกระยะเวลาในการขึ้นคร่อมและสอดใส่ (ML และ IL ซึ่งวัดจากเวลาที่นำกรงเล็กด้านในออกจนถึงการขึ้นคร่อมครั้งแรกหรือการสอดใส่ครั้งแรกตามลำดับ); ความถี่ในการขึ้นคร่อมและสอดใส่ (MF และ IF ซึ่งวัดจำนวนครั้งในการขึ้นคร่อมและสอดใส่ตามลำดับ ในชุดการผสมพันธุ์ครั้งแรกและตลอดระยะเวลาการผสมพันธุ์ทั้งหมด); ระยะเวลาในการหลั่งน้ำอสุจิ (EL ซึ่งวัดจากเวลาการสอดใส่ครั้งแรกในชุดแรกจนถึงการหลั่งน้ำอสุจิ); ความถี่ในการหลั่งน้ำอสุจิ (EF ซึ่งวัดจำนวนครั้งทั้งหมดของการหลั่งน้ำอสุจิระหว่างการทดสอบการผสมพันธุ์) และช่วงเวลาหลังการหลั่งน้ำอสุจิ (PEI ซึ่งวัดจากเวลาการหลั่งน้ำอสุจิครั้งแรกจนถึงการสอดใส่ครั้งต่อไป) นอกจากนี้ ประสิทธิภาพในการผสมพันธุ์ (CE; จำนวนครั้งของการสอดใส่ในชุดที่กำหนดหารด้วยผลรวมของจำนวนครั้งของการขึ้นคร่อมและจำนวนครั้งของการสอดใส่ในชุดเดียวกัน) และช่วงเวลาระหว่างการสอดใส่ (III; อัตราส่วนระหว่างระยะเวลาการหลั่งน้ำอสุจิในชุดที่กำหนดกับจำนวนครั้งของการสอดใส่ในชุดนั้น) ก็ได้รับการคำนวณสำหรับชุดแรกของกิจกรรมการผสมพันธุ์ด้วย ( Sachs and Barfield, 1976 ; Meisel and Sachs, 1994 ; Melis et al., 2003 ; Sanna et al., 2014a , b , 2015 )
ความมุ่งมั่นของ Dopamine, DOPAC และ Noradrenaline ความเข้มข้นใน Dialysate จาก mPFC
วัดความเข้มข้นของโดปามีน, DOPAC และ NA ในตัวอย่างไดอะไลเซต 20 μL จาก mPFC โดยใช้โครมาโทกราฟีของเหลวความดันสูง (HPLC) ร่วมกับการตรวจจับด้วยไฟฟ้าเคมีโดยใช้เซลล์คู่ 4011 (Coulochem II, ESA, Cambridge, MA, USA) ดังที่ได้อธิบายไว้แล้ว ( Melis et al., 2003 ) การตรวจจับดำเนินการในโหมดรีดักชันที่ +350 และ −180 mV เครื่อง HPLC ติดตั้งคอลัมน์ Supelcosil C18 (7.5 ซม. × 3.0 มม. เส้นผ่านศูนย์กลางภายใน, ขนาดอนุภาค 3 μm; Supelco, Supelchem, มิลาน, อิตาลี) โดยใช้สารละลาย 0.06 M ซิเตรต/อะซิเตต pH 4.2 ที่มีเมทานอล 20% v/v, 0.1 mM EDTA, 1 μM ไตรเอทิลอะมีน และ 0.03 mM โซเดียมโดเดซิลซัลเฟต เป็นเฟสเคลื่อนที่ ที่อัตราการไหล 0.6 มล./นาที และอุณหภูมิห้อง ความไวของการวิเคราะห์คือ 0.125 pg สำหรับโดปามีน, 0.1 pg สำหรับ DOPAC และ 0.2 pg สำหรับ NA
จุลกายวิภาคศาสตร์เนื้อเยื่อ
เมื่อสิ้นสุดการทดลอง หนูทดลองจะถูกฆ่าโดยการตัดหัว จากนั้นนำสมองออกจากกะโหลกทันทีและแช่ในสารละลายฟอร์มาลดีไฮด์ 4% เป็นเวลา 12-15 วัน หลังจากนั้นจึงทำการตัดชิ้นเนื้อสมองเป็นแผ่นบางๆ ขนาด 40 ไมโครเมตรด้วยเครื่องตัดชิ้นเนื้อแช่แข็ง ย้อมด้วยสีแดงกลาง (Neutral Red) และตรวจสอบด้วยกล้องจุลทรรศน์แบบเฟสคอนทราสต์ จากนั้นจึงระบุตำแหน่งของปลายหัววัดใน mPFC โดยการติดตามเส้นทางของหัววัดผ่านชิ้นเนื้อสมองหลายแผ่น (ดูรูปที่1 ) เฉพาะหนูทดลองที่มีส่วนที่ใช้งานของเยื่อกรองอยู่ในตำแหน่งที่ถูกต้องในช่อง PrL และ IL ของ mPFC เท่านั้นที่จะนำมาพิจารณาในการประเมินผลทางสถิติ (หนูทดลองหนึ่งตัวจากแต่ละกลุ่มทดลองจะถูกคัดออกในขั้นตอนนี้)
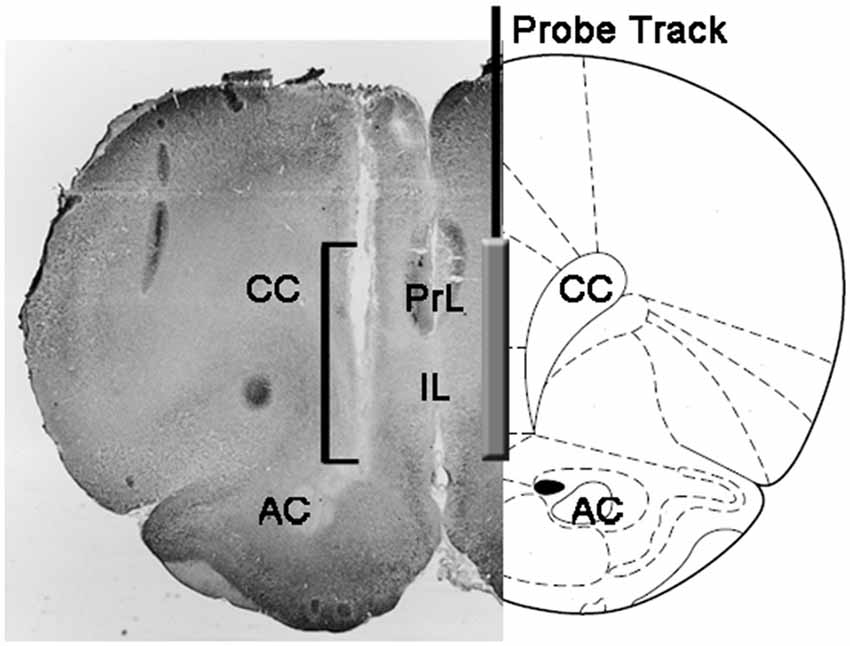 รูป 1. การเป็นตัวแทนแผนผังของส่วนชเวียนของสมองหนูแสดงการติดตามของการสอบสวน microdialysis ในส่วน PrL และ IL ของเยื่อหุ้มสมอง prefrontal อยู่ตรงกลาง (mPFC; Paxinos และ Watson, 2004) กรอบสี่เหลี่ยมจัตุรัสในภาพถ่ายขนาดเล็กแสดงส่วนของส่วนสีแดงกลางที่เป็นกลางซึ่งแสดงส่วนที่ทำงานของเมมเบรนแบบ dialyzing ของโพรบ microdialysis ตัวย่อ: PRL พื้นที่ก่อนกำหนด IL, พื้นที่ infralimbic; AC, commissura ด้านหน้า; CC, callosum คลัง
สถิติ
การวิเคราะห์ทางสถิติของชีวเคมี (โดปามีน, DOPAC และ NA) และพฤติกรรม (NCPEL และ NCPEF, ML, IL และ EL, MF, IF และ EF และ PEI) ข้อมูลได้ดำเนินการอย่างใดอย่างหนึ่งรวมทั้งวิชาทดลองทั้งหมด พฤติกรรมการมีเพศสัมพันธ์) หรือยกเว้นผู้ที่ไม่ได้มีเพศสัมพันธ์กับอุทานในระหว่างการทดลอง microdialysis ในกรณีแรกเมื่อสัตว์ทั้งหมดรวมอยู่ในการวิเคราะห์สัตว์ที่ไม่ได้แสดง NCPE ภายในเวลาที่ผู้หญิงไม่สามารถเข้าถึงได้หรือไม่ได้ติดตั้งหรือ intromit หรืออุทานกับเพศหญิงที่มีอยู่ได้รับมอบหมายคะแนนเต็มช่วง: 1800 s หาก ตัวผู้ไม่ได้แสดง NCPE ใน 30 ขั้นต่ำที่ไม่สามารถเข้าถึงตัวเมียได้ 900 s สำหรับ ML และ IL หากตัวผู้ไม่ได้เมานต์หรือ intromit กับตัวเมียที่มีอยู่ 1800 s สำหรับ EL หากชายไม่ได้พุ่งออกมาและ 600 s สำหรับ PEI หากชายไม่ได้อยู่ในภาวะ intromit หลังจากพุ่งออกมาครั้งแรก ในกรณีที่สองสัตว์ที่ไม่ได้มีเพศสัมพันธ์กับอุทานถูกแยกออกจากการวิเคราะห์ สิ่งนี้ทำเพื่อประเมินว่าความแตกต่างในพฤติกรรมทางเพศอาจมีความสัมพันธ์กับความแตกต่างของความเข้มข้นของสารกระตุ้นโดปามีนนอกเซลล์, DOPAC และ NA ใน mPFC ของสายหนูหนูโรมันในช่วงระยะที่สองของกิจกรรมทางเพศ ของอาสาสมัครที่ไม่แสดงพฤติกรรมทางเพศโดยกำหนดค่าคงที่สำหรับพารามิเตอร์ทางเพศที่วิเคราะห์แล้ว
มีการวิเคราะห์ทางสถิติหลายครั้งโดยใช้ ANOVA เพื่อตรวจจับและอธิบายความแตกต่างที่อาจเกิดขึ้นระหว่างเงื่อนไขการทดลองที่ใช้ ก่อนทำการวิเคราะห์ ANOVA ชุดข้อมูลของตัวแปรทดลองแต่ละตัวจะถูกตรวจสอบความสม่ำเสมอของความแปรปรวนระหว่างกลุ่มทดลองทั้งสี่กลุ่ม (ทำกับสัตว์ทดลองทั้งหมดหรือเฉพาะหนูที่ผสมพันธุ์จนถึงการหลั่งน้ำอสุจิ) โดยใช้การทดสอบของ Bartlett หรือ Levine ขึ้นอยู่กับกรณี เมื่อพบความแตกต่างอย่างมีนัยสำคัญในความแปรปรวน ชุดข้อมูลจะถูกแปลงเป็นลอการิทึม (เช่น ค่า Y ของการทดลองเปลี่ยนเป็นค่า Log Y) ตรวจสอบความสม่ำเสมอของความแปรปรวนอีกครั้ง แล้วจึงวิเคราะห์ด้วย ANOVA โดยสรุป พารามิเตอร์ทางพฤติกรรมที่ได้มาก่อน (เช่น ในกรณีที่ตัวเมียเข้าถึงไม่ได้) และระหว่างการผสมพันธุ์ครั้งแรก (ตั้งแต่การขึ้นคร่อม/สอดใส่ครั้งแรก จนถึงการขึ้นคร่อม/สอดใส่ครั้งแรกหลังการหลั่งน้ำอสุจิครั้งแรก) ของหนูตัวผู้สายพันธุ์ RHA และ RLA ที่ยังไม่เคยมีประสบการณ์ทางเพศและมีประสบการณ์ทางเพศแล้ว จะถูกวิเคราะห์โดยใช้การวิเคราะห์ความแปรปรวนแบบสองทาง (ANOVA) โดยใช้สายพันธุ์หนูและระดับประสบการณ์ทางเพศเป็นปัจจัยระหว่างกลุ่ม (ค่าเฉลี่ยของพารามิเตอร์ทางพฤติกรรมแสดงในตารางที่1และ ค่า Fและระดับนัยสำคัญของการวิเคราะห์ ANOVA แสดงในตารางที่2 )
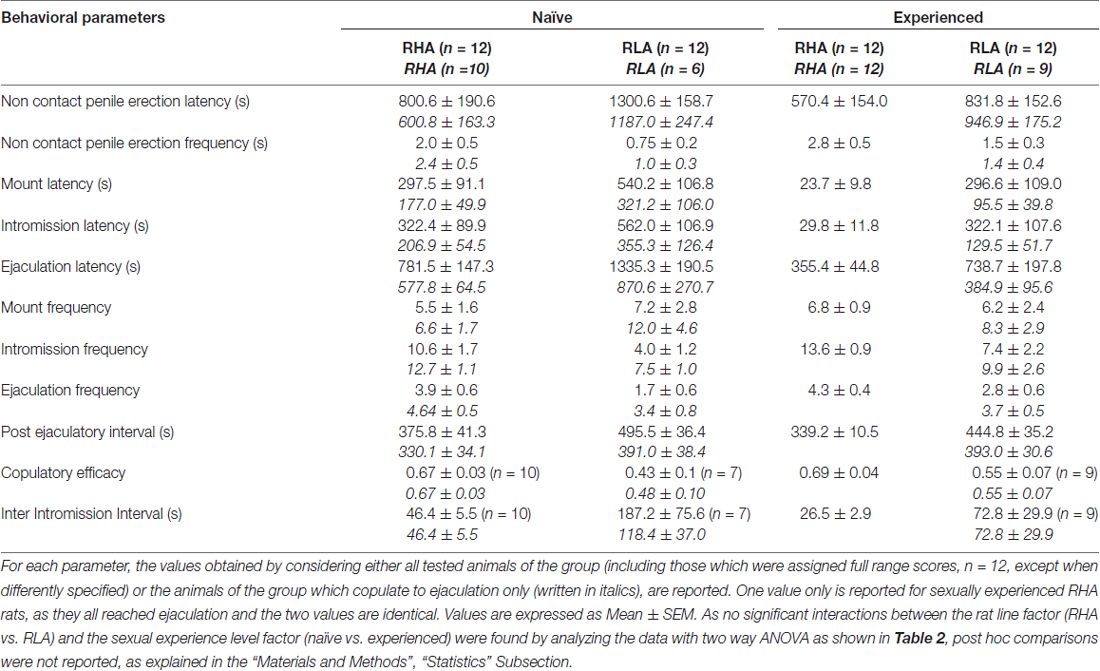 1 ตาราง. พารามิเตอร์ copulatory วัดในชุดแรกของกิจกรรม copulatory (ซึ่งเริ่มต้นด้วยการเมานท์ครั้งแรก / intromission เมื่อเพศหญิงจะทำให้สามารถเข้าถึงชายและสิ้นสุดหลังจากช่วงเวลา ejaculatory โพสต์กับเมาท์ / intrommision แรกของซีรีส์ที่สอง) และ non อวัยวะเพศชาย การแข็งตัวของหนูที่ไร้สมรรถภาพทางเพศและมีประสบการณ์ RHA และ RLA
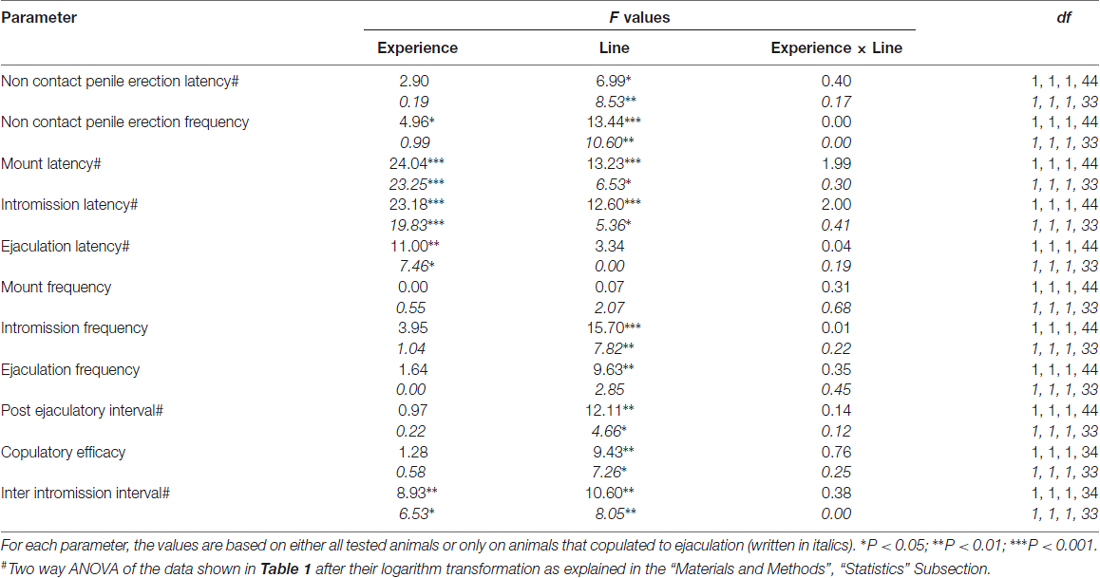 2 ตาราง. F ค่าและระดับนัยสำคัญของ ANOVA แบบสองทางที่ดำเนินการกับข้อมูลที่รายงานในตาราง 1 โดยใช้สายหนู (RHA กับ RLA) และระดับประสบการณ์ทางเพศ (ไร้เดียงสาเทียบกับประสบการณ์) เป็นปัจจัยระหว่างวิชา
นอกจากนี้ ยังมีการวิเคราะห์ข้อมูลโดยรวมที่ได้จากหนูแต่ละตัวระหว่างการทำไมโครไดอะไลซิส โดยคำนวณค่า AUC ที่ได้จากการพล็อตค่าความเข้มข้นของโดปามีน, DOPAC หรือ NA หรือจำนวนการแข็งตัวของอวัยวะเพศโดยไม่สัมผัส, การขึ้นคร่อม, การสอดใส่ และการหลั่งน้ำอสุจิ เทียบกับเวลา (เริ่ม 1 ชั่วโมงหลังจากนำหนูตัวผู้เข้าไปในกรงผสมพันธุ์จนถึงสิ้นสุดการทดลอง −180 นาที แบ่งเป็นช่วงละ 15 นาที สำหรับค่าทางประสาทเคมี– หรือในเวลาที่นำหนูตัวเมียเข้าไปในกรงผสมพันธุ์สำหรับพารามิเตอร์ทางพฤติกรรม) จากนั้นจึงเปรียบเทียบค่าที่คำนวณได้โดยใช้ ANOVA สองทาง โดยใช้สายพันธุ์หนูและระดับประสบการณ์ทางเพศเป็นปัจจัยระหว่างกลุ่ม (ค่าเฉลี่ยของ AUC ของพารามิเตอร์ทางประสาทเคมีและพฤติกรรมแสดงในตารางที่4และ ค่า Fและระดับนัยสำคัญของการวิเคราะห์ ANOVA แสดงในตารางที่5 ) สุดท้ายนี้ ได้ทำการวิเคราะห์ข้อมูลแต่ละชุดอย่างละเอียดมากขึ้น (เช่น ค่าความเข้มข้นของโดปามีน, DOPAC, NA และจำนวนการแข็งตัวของอวัยวะเพศที่ไม่สัมผัส, การขึ้นคร่อม, การสอดใส่ และการหลั่งน้ำอสุจิ เทียบกับเวลา) โดยใช้การวิเคราะห์ความแปรปรวนแบบแฟคเตอร์ (ANOVA) สำหรับการวัดซ้ำ โดยใช้สายพันธุ์หนูและระดับประสบการณ์ทางเพศเป็นปัจจัยระหว่างกลุ่ม และเวลา (เช่น เศษส่วนของไดอะไลเซต) เป็นปัจจัยภายในกลุ่ม ( ค่า Fและระดับนัยสำคัญของการวิเคราะห์ ANOVA เหล่านี้แสดงในตารางที่6 ) นอกจากนี้ยังได้ทำการวิเคราะห์ในลักษณะเดียวกันโดยพิจารณาเฉพาะค่าพื้นฐานของพารามิเตอร์ทางประสาทเคมี (ตัวอย่างไดอะไลเซตสี่ตัวอย่างสุดท้ายที่เก็บก่อนนำหนูตัวเมียที่พร้อมผสมพันธุ์เข้าไปในกรงผสมพันธุ์) ซึ่งค่าเฉลี่ยแสดงในตารางที่3เนื่องจากพบปฏิสัมพันธ์ลำดับที่หนึ่ง แต่ไม่พบปฏิสัมพันธ์ลำดับที่สอง เมื่อทำการวิเคราะห์ความแปรปรวนแบบแฟคเตอร์ทั่วไปสำหรับการวัดซ้ำ โดยเฉพาะอย่างยิ่งปฏิสัมพันธ์ระหว่างสายพันธุ์ × เวลา และประสบการณ์ × เวลา สำหรับพารามิเตอร์ทางประสาทเคมี (ดูตารางที่6 ) จึงได้ทำการวิเคราะห์ความแปรปรวนแบบสองทาง โดยใช้สายพันธุ์หรือระดับประสบการณ์ทางเพศเป็นปัจจัยระหว่างกลุ่ม และเวลาเป็นปัจจัยภายในกลุ่ม กับชุดข้อมูลเหล่านี้ โดยเปรียบเทียบโดยตรงระหว่างหนู RHA ที่ไม่เคยมีประสบการณ์ทางเพศหรือมีประสบการณ์ทางเพศ กับหนู RLA หรือหนู RHA ที่มีประสบการณ์ทางเพศ กับหนูที่ไม่เคยมีประสบการณ์ทางเพศ หรือหนู RLA ที่มีประสบการณ์ทางเพศ กับหนูที่ไม่เคยมีประสบการณ์ทางเพศ ผลลัพธ์ของ การเปรียบเทียบแบบ จับคู่หลังการวิเคราะห์โดยใช้การทดสอบ HSD ของ Tukey กับปฏิสัมพันธ์ที่มีนัยสำคัญที่พบโดยการวิเคราะห์ความแปรปรวนแบบสองทางเหล่านี้ แสดงในรูปที่2ในกรณีอื่นๆ ทั้งหมด ไม่ได้รายงานการเปรียบเทียบ หลังการวิเคราะห์เนื่องจาก ANOVA ไม่พบปฏิสัมพันธ์ที่มีนัยสำคัญระหว่างสายพันธุ์หนู ระดับประสบการณ์ทางเพศ และเวลา การวิเคราะห์ทางสถิติทั้งหมดดำเนินการโดยใช้โปรแกรม Graph Pad 5 (PRISM, San Diego, CA, USA) และ STATISTICA 12 (Statsoft, Tulsa, OK, USA) โดยกำหนดระดับนัยสำคัญไว้ที่P < 0.05
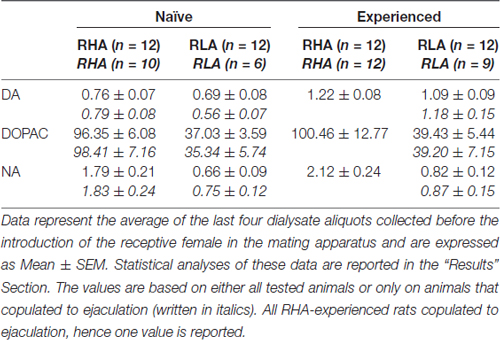 3 ตาราง. Basal dopamine (DA), 3,4-Dihydroxyphenylacetic acid (DOPAC) และ noradrenaline (NA) ความเข้มข้น (nM) ใน dialysate จากเยื่อหุ้มสมอง prefrontal cortex (mPFC) ของหนูที่มีเพศสัมพันธ์และมีประสบการณ์ RHA และ RLA
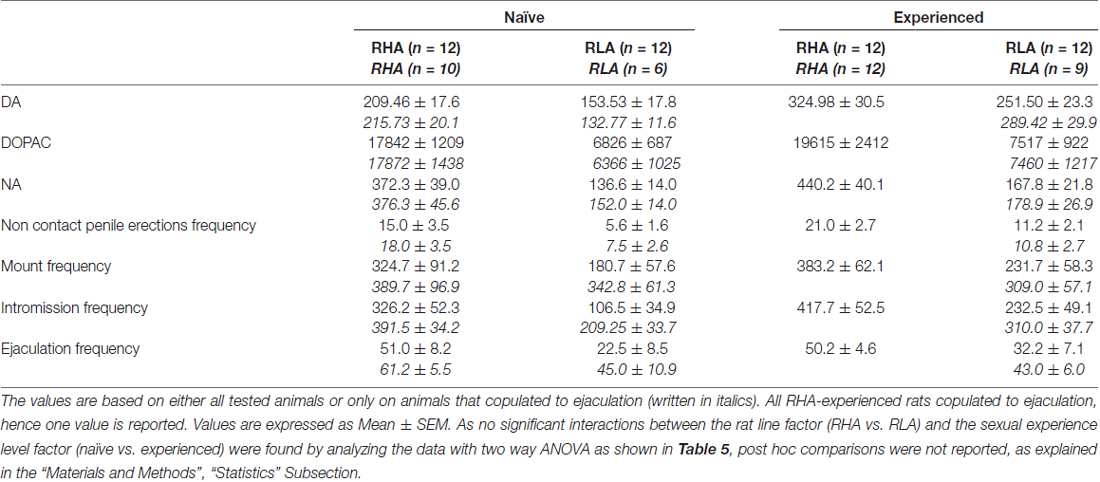 4 ตาราง. การประเมินความแตกต่างโดยรวมของความเข้มข้น DA, DOPAC และ NA และพฤติกรรมทางเพศระหว่างหนูที่ไร้สมรรถภาพทางเพศและหนูที่มีประสบการณ์ RHA และ RLA โดยการวิเคราะห์ AUC เฉลี่ยที่ได้จากผลลัพธ์ที่แสดงในรูป 2 และ 3.
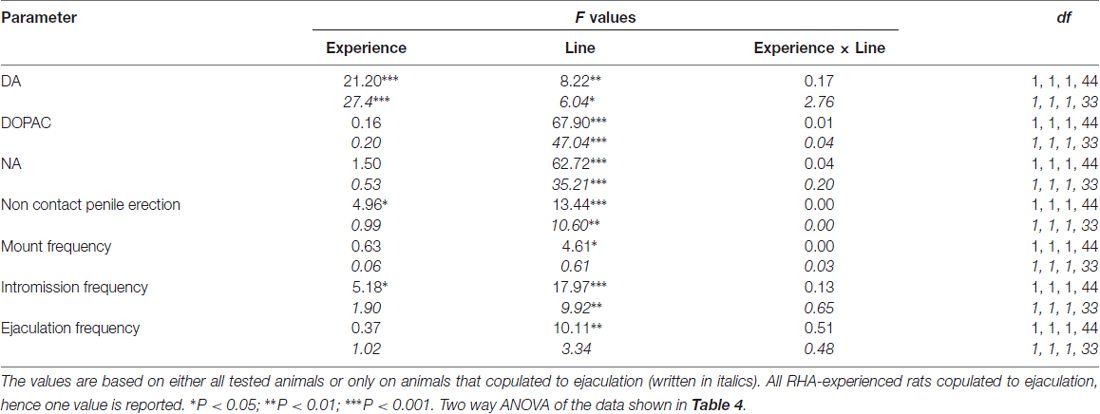 5 ตาราง. F ค่าและระดับนัยสำคัญของ ANOVAs แบบสองทางที่ดำเนินการกับข้อมูลที่รายงานในตาราง 4 โดยใช้สายหนู (RHA กับ RLA) และระดับประสบการณ์ทางเพศ (ไร้เดียงสาเทียบกับประสบการณ์) เป็นปัจจัยระหว่างวิชา
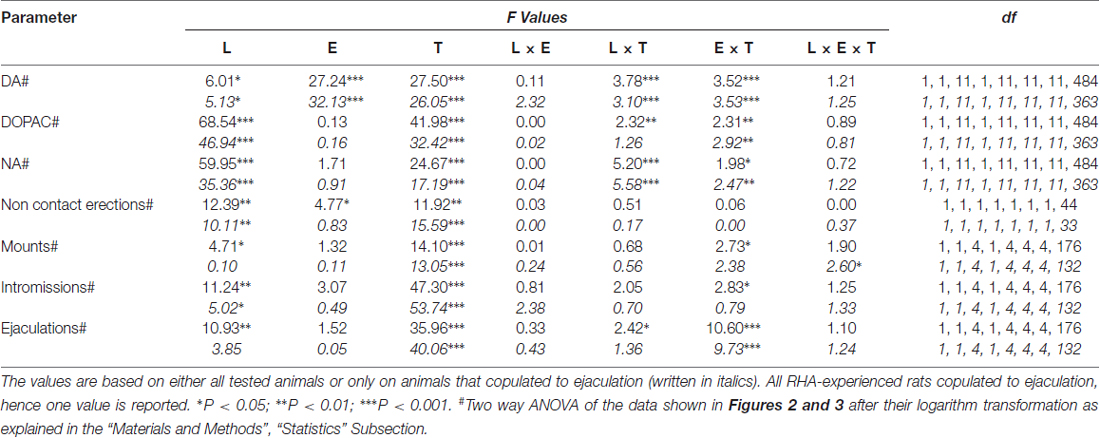 6 ตาราง. F ค่าและระดับความสำคัญของ ANOVA แบบแฟกทอเรียลทั่วไปสำหรับการวัดซ้ำที่ดำเนินการกับผลลัพธ์ที่แสดงในรูป 2 และ 3 โดยใช้เส้นหนู (L; RHA เทียบกับ RLA) และระดับประสบการณ์ทางเพศ (E) (ไร้เดียงสาเทียบกับประสบการณ์) ระหว่างปัจจัยเรื่องและเวลา (T) (เศษส่วน dialysate) เป็นปัจจัยภายในวิชา
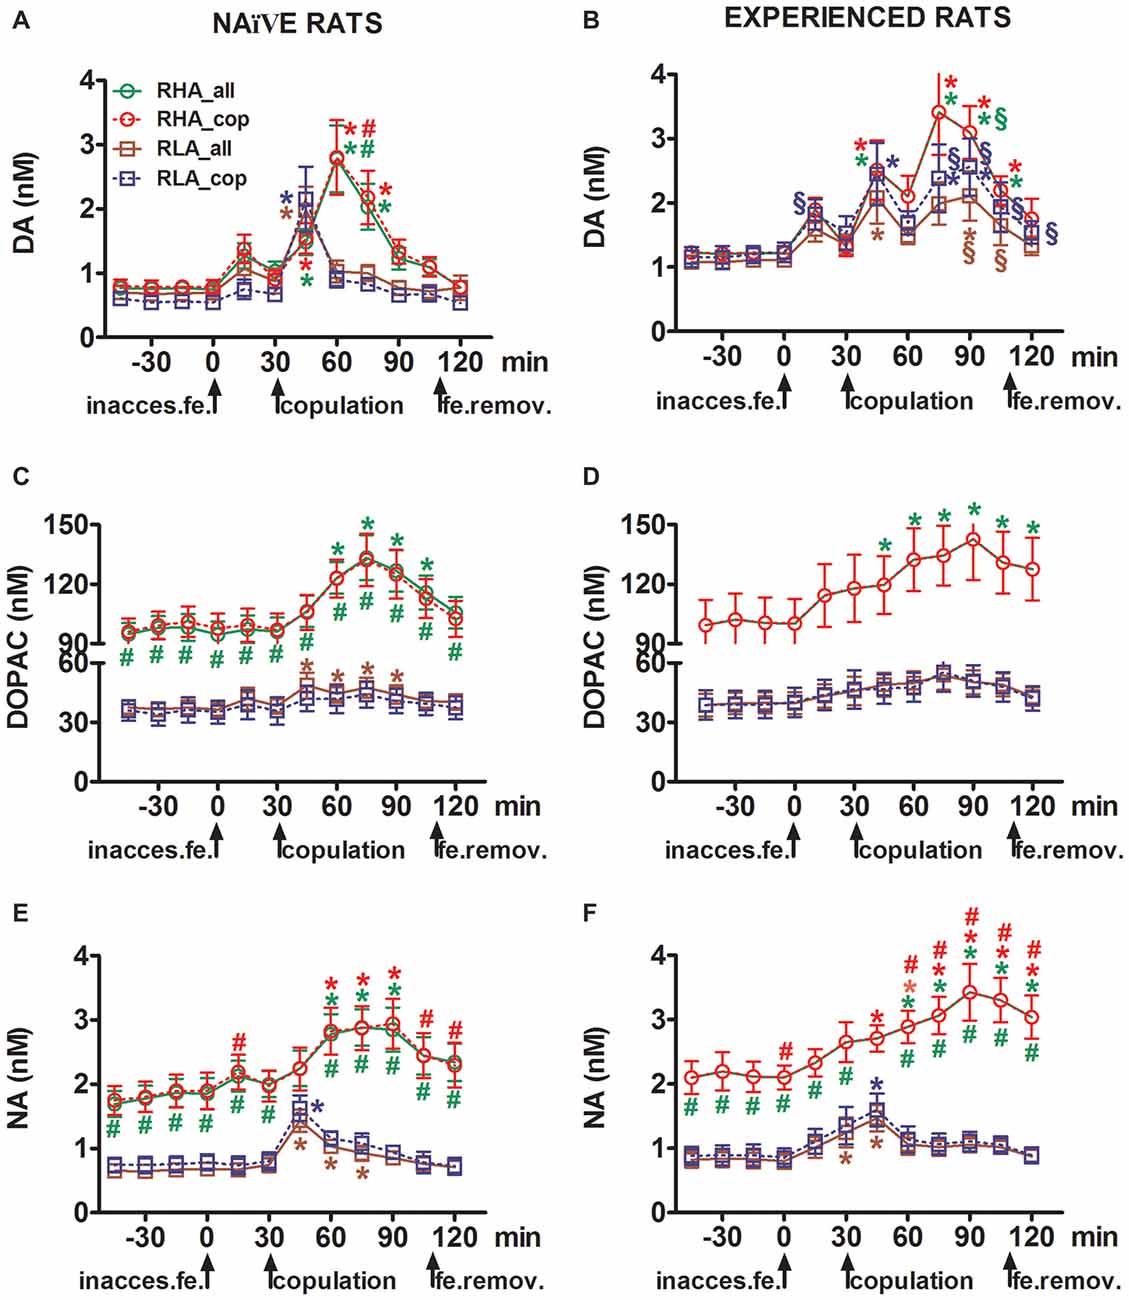 รูป 2. Dopamine (DA), DOPAC และ noradrenaline (NA) ความเข้มข้นใน mPFC dialysates จากการมีเพศสัมพันธ์ (A, C, E) และหนูตัวผู้ RHA และ RLA ที่มีประสบการณ์ (B, D, F) ระหว่างทำกิจกรรมทางเพศกับหญิงที่เปิดกว้าง การมีเพศสัมพันธ์ไร้เดียงสา (กล่าวคือไม่เคยสัมผัสกับผู้หญิงที่เปิดรับทางเพศสัมพันธ์มาก่อน) และมีประสบการณ์ทางเพศ (ซึ่งได้รับการทดสอบการมีเพศสัมพันธ์ห้าครั้ง) ของทั้งสองบรรทัดด้วย microdialysis probe stereotaxically ฝังใน mPFC หัววัดแบบไมโครดีซีถูกนำมาใช้ร่วมกับบัฟเฟอร์การล้างไตตามที่อธิบายไว้ในส่วน "วัสดุและวิธีการ" หลังจากการรวบรวมของ dialysate aliquots สี่ตัวเพื่อหาค่าฐานแล้วตัวเมียที่รับไม่สามารถเข้าถึงได้จะถูกวางไว้ในกรงขนาดเล็กของอุปกรณ์การผสมพันธุ์ (time = 0, inaccess.fe) หลังจาก 30 นาทีกรงขนาดเล็กจะถูกลบออกและอนุญาตให้มีเพศสัมพันธ์สำหรับ 75 นาที (การมีเพศสัมพันธ์) หลังจากที่หญิงถูกลบออกจากกรงผสมพันธุ์ (fe.remov) ในระหว่างการทดลองจะทำการวัดการแข็งตัวของหน้าสัมผัสแบบไม่สัมผัสและพารามิเตอร์ของ copulatory และทำการแยกส่วนลงตัวของ dialysate ทุกๆ 15 นาทีและวิเคราะห์สำหรับ dopamine, DOPAC และ NA ตามที่อธิบายไว้ในส่วน "วัสดุและวิธีการ" ค่าหมายถึง± SEM ของค่าที่ได้รับจากหนู 12 ทั้งหมดต่อกลุ่ม (RHA_all = เส้นสีเขียวที่เป็นของแข็ง, RLA_all = เส้นสีน้ำตาลทึบ) หรือที่เกี่ยวข้องกับการพุ่งออกมาเท่านั้น (RHA_cop = เส้นสีแดงประ; RLA_cop = เส้นสีน้ำเงินประ) ในหนูที่มีประสบการณ์ RHA สัตว์ทุกตัวจะมีเพศสัมพันธ์และค่าเหมือนกัน * * * *P <0.05 เมื่อเทียบกับค่าพื้นฐาน (ไม่มีเพศหญิง) ของกลุ่ม (สีเขียวสำหรับ RHA_all; สีแดงสำหรับ RHA_cop, สีน้ำตาลสำหรับ RLA_all, สีน้ำเงินสำหรับ RLA_cop); #P <0.05 เทียบกับค่าที่สอดคล้องกันของกลุ่ม RLA (สีแดง RHA_all เทียบกับ RLA_all; สีเขียว RHA_cop เทียบกับ RLA_cop); §P <0.05 เมื่อเทียบกับค่าที่ตรงตามเวลาของหนูที่ไร้เดียงสาทางเพศ (สีเขียว RHA_all ที่มีประสบการณ์เทียบกับไร้เดียงสา RHA_all สีแดง RHA_cop ที่มีประสบการณ์เทียบกับไร้เดียงสา RHA_cop สีน้ำตาล RLA_all ที่มีประสบการณ์เทียบกับไร้เดียงสา RLA_all สีฟ้า RLA_cop ที่มีประสบการณ์เทียบกับไร้เดียงสา RLA_cop) (ANOVA แบบสองทางที่ทำกับข้อมูลที่แสดงหลังจากการแปลงลอการิทึมตามที่อธิบายไว้ในส่วนย่อย "วัสดุและวิธีการ" "สถิติ" ตามด้วยการทดสอบ HSD ของ Tukey)
ผลสอบ
หนู RHA และ RLA แสดงจำนวนของการติดตั้งแบบไม่สัมผัสที่แตกต่างกันและพฤติกรรมการมีเพศสัมพันธ์ที่แตกต่างกัน
จากการศึกษาครั้งก่อนๆ ( Sanna et al., 2014a , b , 2015 ) พบว่าจำนวนหนูตัวผู้ RHA และ RLA ที่ไม่เคยมีเพศสัมพันธ์มาก่อนที่มีพฤติกรรมทางเพศแตกต่างกัน เมื่อนำมาอยู่ร่วมกับหนูตัวเมียที่พร้อมผสมพันธุ์ ในระหว่างการเก็บตัวอย่างของเหลวจาก mPFC โดยวิธีการไมโครไดอะไลซิสในสมอง กล่าวโดยสรุป ในการศึกษานี้ หนูตัวผู้ RHA ที่ไม่เคยมีเพศสัมพันธ์มาก่อน 10 ตัวจาก 12 ตัว (83%) ผสมพันธุ์จนถึงจุดสุดยอดในการทดสอบการผสมพันธุ์ครั้งแรก ในขณะที่หนู RLA ที่ไม่เคยมีเพศสัมพันธ์มาก่อนเพียง 6 ตัวจาก 12 ตัว (50%) เท่านั้นที่ทำได้ในระหว่างการทดลองไมโครไดอะไลซิส ความแตกต่างนี้ยังพบในหนูตัวผู้ RHA และ RLA ที่มีประสบการณ์ทางเพศแล้ว (หลังจากการทดสอบการผสมพันธุ์ห้าครั้ง) แม้ว่าจะลดลง โดยหนู RHA ทั้ง 12 ตัวถึงจุดสุดยอด ในขณะที่หนู RLA 9 ตัวจาก 12 ตัวทำได้ในระหว่างการทดลองไมโครไดอะไลซิส จากการศึกษาครั้งนี้ พบว่าหนูโรมันสองสายพันธุ์แสดงความแตกต่างกันทั้งในด้านระยะเวลาและความถี่ของการแข็งตัวของอวัยวะเพศโดยไม่สัมผัส เมื่อเผชิญกับตัวเมียที่พร้อมผสมพันธุ์แต่เข้าถึงไม่ได้ รวมถึงรูปแบบพฤติกรรมการผสมพันธุ์ที่แตกต่างกันด้วย ความแตกต่างเหล่านี้พบได้ทั้งเมื่อพิจารณาข้อมูลของสัตว์ทดลองทั้งหมดในกลุ่มใดกลุ่มหนึ่ง โดยไม่คำนึงว่าพวกมันจะผสมพันธุ์จนถึงจุดหลั่งน้ำอสุจิหรือไม่ (เช่น การให้คะแนนเต็มแก่สัตว์ที่ไม่แสดงพฤติกรรมดังกล่าว นั่นคือ หนูที่ไม่ผสมพันธุ์จนถึงจุดหลั่งน้ำอสุจิ) หรือเมื่อพิจารณาเฉพาะข้อมูลของสัตว์ที่แสดงพฤติกรรมดังกล่าวในกลุ่มนั้น ๆ เท่านั้น (เช่น สัตว์ที่ผสมพันธุ์จนถึงจุดหลั่งน้ำอสุจิ; ตารางที่1 ) ดังนั้น การวิเคราะห์ทางสถิติของค่าการแข็งตัวของอวัยวะเพศโดยไม่สัมผัส (NCPE) และพารามิเตอร์การผสมพันธุ์ที่วัดได้ในชุดแรกของกิจกรรมการผสมพันธุ์โดยใช้ ANOVA สองทาง พบว่ามีความแตกต่างอย่างมีนัยสำคัญระหว่างหนูสองสายพันธุ์ ไม่ว่าจะพิจารณาหนูทดลองทั้งหมดหรือเฉพาะหนูที่ผสมพันธุ์ในกลุ่มทดลองทั้งสี่กลุ่ม (ดูตารางที่2 ) ในความเป็นจริง เมื่อพิจารณาข้อมูลที่ได้จากสัตว์ทดลองทั้งหมด พบว่าจำนวนการแข็งตัวของอวัยวะเพศโดยไม่สัมผัสสูงกว่า และ NCPEL, ML, IL และ PEI สั้นกว่าอย่างมีนัยสำคัญในหนู RHA เมื่อเทียบกับหนู RLA นอกจากนี้ EF และ CE ยังสูงกว่า ในขณะที่ III สั้นกว่าอย่างมีนัยสำคัญในหนู RHA เมื่อเทียบกับหนู RLA ความแตกต่างบางประการข้างต้นระหว่างหนูสายพันธุ์โรมันทั้งสองสายพันธุ์มีแนวโน้มที่จะลดลงหรือหายไปเมื่อทำการทดสอบการผสมพันธุ์ซ้ำๆ อย่างไรก็ตาม ความแตกต่างบางประการเหล่านี้ยังคงปรากฏอยู่หลังจากพฤติกรรมทางเพศคงที่แล้วจากการมีประสบการณ์ทางเพศซ้ำๆ ผลลัพธ์ที่คล้ายกันนี้ได้จากการพิจารณาเฉพาะค่าของสัตว์ในกลุ่มทดลองทั้งสี่กลุ่มที่ผสมพันธุ์จนถึงการหลั่งน้ำอสุจิ ยกเว้น EF (ดูตารางที่1และ2 )
ความเข้มข้นพื้นฐานของโดปามีนนอกเซลล์, DOPAC และ Noradrenaline ใน mPFC dialysates จากการมีเพศสัมพันธ์ไร้เดียงสาและ RHA และ RLA ที่มีประสบการณ์
ภายใต้เงื่อนไขการทดลองในปัจจุบันปริมาณโดปามีน, DOPAC และ NA ใน dialysates ที่ได้รับจาก mPFC ของทุกคน (เช่นไม่ว่าพวกมันจะมีเพศสัมพันธ์กับการหลั่งหรือไม่ก็ตาม) ทางเพศหนูที่ไร้เชื้อ RHA และ RLA คือ 2.32 pg และ 2.11 pg สำหรับ dopamine 322.56 pg และ 124.42 pg สำหรับ DOPAC และ 6.05 pg และ 2.24 pg สำหรับ NA ตามลำดับใน 20 μlของ dialysate ปริมาณที่คล้ายกันถูกวัดใน dialysates ที่ได้รับจาก mPFC ของหนูที่มีประสบการณ์ RHA และ RLA (โดปามีน: 3.73 pg และ 3.33 pg, DOPAC: 353.62 pg และ 133.32 pg, NA: 7.17 pg และ 2.78 pg ใน RHA และ RLA ตามลำดับ) . ค่าเหล่านี้บ่งบอกถึงความเข้มข้นของ≅0.8 – 1.2 nM และ≅95 – 100 nM สำหรับ dopamine นอกเซลล์และ DOPAC ตามลำดับและ≅1.8 – 2.2 nM สำหรับ extracellular NA ใน mPFC ของ RHA rats และความเข้มข้น≅0.8 nMX – 1.2 nMX สำหรับ ncx และ≅35 – 40 nM สำหรับโดปามีนนอกเซลล์และ DOPAC ตามลำดับและ≅0.6 – 0.9 nM สำหรับ extracellular NA ใน mPFC ของหนู RLA (ตาราง 3) ค่าดังกล่าวข้างต้นได้มาหลังจากช่วงเวลาสมดุลของ 2 h ของ dialysis buffer ด้วยของเหลวนอกเซลล์ mPFC เนื่องจากการฟื้นตัวของโดปามีนจริง DOPAC และ NA ของโพรบฟอกไตนั้นประมาณว่าใกล้เคียงกับ 20%, โดปามีนนอกเซลล์, ความเข้มข้นของ DOPAC และ NA อาจใกล้เคียงกับ≅4 – 5 nM ทั้งสองบรรทัดสำหรับโดปามีน, ≅500 และ≅ 200 nM สำหรับ DOPAC และ≅10และ≅4 nM สำหรับ NA ใน mPFC ของหนู RHA และ RLA ตามลำดับ ANOVA แบบแฟคทอเรียลสำหรับมาตรการซ้ำ ๆ ที่ทำกับค่าข้างต้นหลังจากการแปลงลอการิทึมเผยให้เห็นความแตกต่างอย่างมีนัยสำคัญในระดับฐานของโดปามีนระหว่างหนูที่มีเพศสัมพันธ์กับหนูที่มีประสบการณ์ทางเพศ (F(1,44,132) = 26.05, P <0.001) และในระดับพื้นฐานของ DOPAC (F(1,44,132) = 63.36, P <0.001) และของ NA (F(1,44,132) = 42.14, P <0.001) ระหว่างหนู RHA และ RLA (เก็บตัวอย่างสี่ตัวสุดท้ายก่อนนำตัวเมียไปขังในกรงเล็ก) พบค่าที่คล้ายกันเมื่อพิจารณาเฉพาะหนูที่มีเพศสัมพันธ์กับการหลั่งในระหว่างการทดลองด้วยเครื่องไตเทียม (ตารางที่ 3) ในกรณีนี้แฟคทอเรียล ANOVAs สำหรับมาตรการซ้ำ ๆ ที่ทำกับค่าหลังจากการแปลงลอการิทึมเปิดเผยความแตกต่างอย่างมีนัยสำคัญในระดับฐานของโดปามีนระหว่างหนูที่มีเพศสัมพันธ์และหนูที่มีประสบการณ์ทางเพศ (F(1,33,99) = 26.97, P <0.001) และในระดับพื้นฐานของ DOPAC (F(1,33,99) = 42.95, P <0.001) และของ NA (F(1,33,99) = 27.63, P <0.001) ระหว่าง RHA และ RLA หนู
ความเข้มข้นของโดปามีนนอกเซลล์, DOPAC และ Noradrenaline ใน mPFC dialysates จากNaïveทางเพศและ RHA และ RLA หนูที่มีประสบการณ์จะเปลี่ยนไปตามกิจกรรมทางเพศที่ต่างกัน
การปรากฏตัวของหนูตัวเมียที่เข้าถึงยากในกรงเล็กด้านใน และการมีปฏิสัมพันธ์ทางเพศโดยตรงในภายหลัง ทำให้ความเข้มข้นของโดปามีนนอกเซลล์ DOPAC และ NA ในสารละลายไดอะไลเซตของ mPFC ที่ได้จากหนูตัวผู้ RHA และ RLA ทั้งที่ยังไม่เคยมีเพศสัมพันธ์และเคยมีเพศสัมพันธ์แล้ว เพิ่มสูงขึ้น แม้ว่าจะมีความแตกต่างอย่างมีนัยสำคัญระหว่างหนูทั้งสองสายพันธุ์และระดับประสบการณ์ ไม่ว่าจะพิจารณาสัตว์ทดลองทั้งหมดหรือเฉพาะหนูที่ผสมพันธุ์จนถึงจุดหลั่งน้ำอสุจิ (รูปที่2 ) ที่จริงแล้ว การวิเคราะห์ความแปรปรวนแบบสองทาง (ANOVA) ของค่า AUC ของความเข้มข้นของโดปามีน DOPAC และ NA แสดงให้เห็นว่าปริมาณโดยรวมของโดปามีน DOPAC และ NA ในการทดสอบทั้งหมด สูงกว่าอย่างมีนัยสำคัญในหนู RHA เมื่อเทียบกับหนู RLA และในหนูที่เคยมีเพศสัมพันธ์แล้วเมื่อเทียบกับหนูที่ยังไม่เคยมีเพศสัมพันธ์ (ดูตารางที่4สำหรับค่า AUC และตารางที่5สำหรับ ค่า Fและระดับนัยสำคัญ) ความแตกต่างเหล่านี้ได้รับการยืนยันเพิ่มเติมโดยการวิเคราะห์ความแปรปรวนแบบแฟคเตอร์จุดต่อจุด (ANOVA) สำหรับการวัดซ้ำของปริมาณโดปามีน DOPAC และ NA ในหนูทดลองสองสายพันธุ์ที่ยังไม่เคยมีประสบการณ์ทางเพศและมีประสบการณ์ทางเพศแล้วตลอดการทดลอง ซึ่งเผยให้เห็นผลกระทบหลักที่มีนัยสำคัญของสายพันธุ์ ประสบการณ์ เวลา และปฏิสัมพันธ์อันดับแรกที่มีนัยสำคัญระหว่างสายพันธุ์ × เวลา และประสบการณ์ × เวลา (ดูตารางที่6สำหรับ ค่า Fและระดับนัยสำคัญ)
ความเข้มข้นของโดปามีนนอกเซลล์, DOPAC และ Noradrenaline ใน mPFC dialysates ที่ได้รับจากการมีเพศสัมพันธ์หนูแรชและหนู RLA เปลี่ยนไปตามกิจกรรมทางเพศที่ต่างกัน
ในเพศที่ไร้เดียงสา RHA และ RLA หนูนอกเซลล์โดพามีน แต่ไม่ใช่ DOPAC เพิ่มขึ้นเป็นครั้งแรกเมื่อวางต่อหน้าหญิงที่ไม่สามารถเข้าถึงได้ในขณะที่หนูเพิ่มขึ้นเฉพาะในหนู RHA ในหนูRïnaïve, โดปามีนนอกเซลล์เพิ่มขึ้นอีกใน 15 นาทีแรกของการมีเพศสัมพันธ์ที่พบกับ DOPAC และ NA การเพิ่มขึ้นของโดปามีนนอกเซลล์, DOPAC และ NA กินเวลาตลอดเวลาของการสังวาส, ด้วยโดปามีน, DOPAC และ NA ถึงค่าสูงสุดที่ 60 นาที, 75 นาทีและ 75 นาทีตามลำดับ, จากนั้นออกมาเป็นเซลล์เสริม DOPAC และ NA ลดลงเป็นค่าที่คล้ายกับค่าฐานหลังจากลบตัวเมีย
ในทางกลับกัน การเพิ่มขึ้นอย่างมีนัยสำคัญครั้งแรกและค่าสูงสุดของโดปามีนนอกเซลล์ DOPAC และ NA เกิดขึ้นในหนู RLA ที่ไม่เคยมีประสบการณ์มาก่อนในช่วง 15 นาทีแรกของการผสมพันธุ์ อย่างไรก็ตาม แตกต่างจากหนู RHA ในหนู RLA โดปามีนนอกเซลล์ DOPAC และ NA มีแนวโน้มที่จะกลับไปสู่ค่าที่คล้ายกับค่าพื้นฐานภายใน 30 นาทีแรกของการมีปฏิสัมพันธ์โดยตรงกับตัวเมีย (ดูรูปที่2A, C, E )
สุดท้าย ในระหว่างการผสมพันธุ์ ระดับโดปามีนนอกเซลล์ที่เพิ่มขึ้นนั้นมีขนาดใหญ่กว่าและคงอยู่นานกว่าในหนู RHA ที่ยังไม่เคยมีเพศสัมพันธ์มาก่อนเมื่อเทียบกับหนู RLA (ดูรูปที่2A ) ในขณะที่เมื่อไม่มีตัวเมีย ระดับความเข้มข้นของโดปามีนนอกเซลล์นั้นคล้ายคลึงกัน แม้จะไม่เหมือนกันทุกประการ ในหนูทั้งสองสายพันธุ์ (ดูด้านบนและตารางที่3 ) ที่น่าสนใจคือ แม้ว่าจะไม่พบความแตกต่างระหว่างหนูโรมันทั้งสองสายพันธุ์ในเปอร์เซ็นต์การเพิ่มขึ้นของความเข้มข้นของ DOPAC และ NA ในระหว่างที่มีตัวเมียที่พร้อมผสมพันธุ์ แต่ก็พบความแตกต่างมากกว่าสองเท่าในค่าสัมบูรณ์ของความเข้มข้นของ DOPAC และ NA ระหว่างหนูทั้งสองสายพันธุ์ ทั้งในสภาวะพื้นฐาน (ดูตารางที่3 ) และตลอดการทดสอบกับตัวเมียที่พร้อมผสมพันธุ์ (ดูรูปที่2C,E )
ความเข้มข้นของโดปามีนนอกเซลล์, DOPAC และ Noradrenaline ใน mPFC Dialysates ที่ได้รับจาก RHA และ RLA หนูที่มีประสบการณ์ทางเพศเปลี่ยนไปในช่วงกิจกรรมทางเพศแตกต่างกัน
จากการศึกษาในหนู RHA และ RLA ที่ยังไม่เคยมีเพศสัมพันธ์มาก่อน พบว่า การมีตัวเมียที่ไม่สามารถเข้าถึงได้และการมีปฏิสัมพันธ์ทางเพศโดยตรงในภายหลัง ส่งผลให้ระดับโดปามีนและ DOPAC ในของเหลวที่ได้จากการล้าง mPFC เพิ่มขึ้นในหนู RHA และ RLA ตัวผู้ที่เคยมีเพศสัมพันธ์มาแล้ว อย่างไรก็ตาม ในกรณีนี้ก็พบความแตกต่างที่เกี่ยวข้องกับสายพันธุ์ของหนูเช่นกัน ไม่ว่าจะพิจารณาสัตว์ทดลองทั้งหมด หรือเฉพาะสัตว์ที่ผสมพันธุ์จนถึงจุดหลั่งน้ำอสุจิ (รูปที่2 ) ในหนู RHA และ RLA ที่เคยมีเพศสัมพันธ์มาแล้ว การเพิ่มขึ้นครั้งแรกของโดปามีนในของเหลวเกิดขึ้นเมื่อมีตัวเมียที่ไม่สามารถเข้าถึงได้ หลังจากนั้น ความเข้มข้นของโดปามีนก็เพิ่มขึ้นระหว่างการผสมพันธุ์ในหนูทั้งสองสายพันธุ์ ความเข้มข้นของโดปามีนถึงจุดสูงสุดหลังจากผสมพันธุ์ไปแล้ว 45-60 นาที และค่อยๆ ลดลงสู่ระดับพื้นฐานเมื่อสิ้นสุดการทดสอบการผสมพันธุ์ (ดูรูปที่2B ) เช่นเดียวกับหนูที่ไม่เคยมีเพศสัมพันธ์มาก่อน ความเข้มข้นของโดปามีนนอกเซลล์สูงกว่าในหนู RHA ที่มีประสบการณ์ทางเพศแล้วเมื่อเทียบกับหนู RLA โดยเฉพาะอย่างยิ่งในตัวอย่างของเหลวที่เก็บในช่วงกลางของระยะการผสมพันธุ์ (หลังจาก 30–45 นาทีของการผสมพันธุ์) ความเข้มข้นของ DOPAC เพิ่มขึ้นในระหว่างที่มีตัวเมียที่ไม่สามารถเข้าถึงได้เฉพาะในหนู RHA เท่านั้น ในขณะที่เพิ่มขึ้นในระดับที่ใกล้เคียงกันในหนูทั้งสองสายพันธุ์ในระหว่างการผสมพันธุ์ (ค่าสูงสุดที่ 75–90 นาที) และมีแนวโน้มที่จะกลับสู่ค่าพื้นฐานเมื่อสิ้นสุดการทดสอบการผสมพันธุ์ (ดูรูปที่2D ) ความเข้มข้นของ NA ก็เพิ่มขึ้นในหนูทั้งสองสายพันธุ์ที่มีประสบการณ์ทางเพศแล้วหลังจากนำตัวเมียเข้ามา โดยมีค่าสูงสุดที่ 90 นาทีในหนู RHA และที่ 45 นาทีในหนู RLA (ดูรูปที่2F ) แตกต่างจากโดปามีน (ดูด้านบน) พบความแตกต่างที่คล้ายกันในการเพิ่มขึ้นของความเข้มข้นของ DOPAC และ NA ในหนูที่มีประสบการณ์ทางเพศจากทั้งสองสายพันธุ์ เมื่อพิจารณาสัตว์ทั้งหมดเทียบกับสัตว์ที่ถึงจุดหลั่งน้ำอสุจิเท่านั้น อย่างไรก็ตาม เช่นเดียวกับที่พบในหนูที่ยังไม่เคยมีประสบการณ์ทางเพศ แม้ว่าเปอร์เซ็นต์การเพิ่มขึ้นของความเข้มข้นของ DOPAC และ NA จะคล้ายกัน แต่พบความแตกต่างอย่างมีนัยสำคัญในค่าสัมบูรณ์ของ DOPAC และ NA ระหว่างหนู RHA และ RLA ที่มีประสบการณ์ทางเพศตลอดการทดสอบ (เช่น ก่อน ระหว่าง และหลังการปรากฏตัวของหนูตัวเมียที่พร้อมผสมพันธุ์) โดยหนู RHA แสดงค่าที่สูงกว่าหนู RLA (ดูตารางที่3สำหรับค่าพื้นฐานและรูปที่2D,Fสำหรับค่าตลอดการทดสอบ)
ประสบการณ์ทางเพศมีอิทธิพลต่อการเปลี่ยนแปลงของความเข้มข้นของโดพามีนและนอร์ราดีนลีนใน mPFC dialysates ที่ได้รับจาก RHA และ RLA หนูในระหว่างกิจกรรมทางเพศ
การเปรียบเทียบความเข้มข้นของโดปามีนและนอร์เอพิเนฟริน (NA) นอกเซลล์ในหนู RHA และ RLA ที่ไม่เคยมีเพศสัมพันธ์และเคยมีเพศสัมพันธ์แล้ว แสดงให้เห็นว่าประสบการณ์ทางเพศเปลี่ยนแปลงความเข้มข้นของโดปามีนนอกเซลล์ และในระดับที่น้อยกว่าคือนอร์เอพิเนฟริน ในหนูทั้งสองสายพันธุ์ ไม่ว่าจะพิจารณาสัตว์ทดลองทั้งหมดหรือเฉพาะหนูที่ผสมพันธุ์จนถึงการหลั่งน้ำอสุจิเท่านั้น (ภาพที่2A, B, E, F ) ดังนั้น จึงพบความแตกต่างอย่างมีนัยสำคัญในค่าพื้นฐานของโดปามีนระหว่างหนูที่ไม่เคยมีเพศสัมพันธ์และเคยมีเพศสัมพันธ์แล้วของทั้งสองสายพันธุ์ (ดูตารางที่3 ) และค่าโดปามีนในระหว่างการผสมพันธุ์โดยทั่วไปจะสูงกว่าในหนู RHA และ RLA ที่เคยมีเพศสัมพันธ์แล้วเมื่อเทียบกับหนูที่ไม่เคยมีเพศสัมพันธ์ (ดูภาพที่2B ) ยิ่งไปกว่านั้น ในหนู RHA ที่เคยมีเพศสัมพันธ์แล้ว แม้ว่าการเพิ่มขึ้นของโดปามีนที่พบในระหว่างการมีตัวเมียที่ไม่สามารถเข้าถึงได้จะตามรูปแบบเวลาเดียวกันกับที่พบในหนูที่ไม่เคยมีเพศสัมพันธ์ แต่ก็พบความแตกต่างในรูปแบบเวลาในระหว่างการผสมพันธุ์ ในความเป็นจริง ในกรณีนี้ ซึ่งแตกต่างจากสิ่งที่สังเกตได้ในหนู RHA ที่ไม่เคยมีเพศสัมพันธ์มาก่อน (มีค่าสูงสุดหลักหนึ่งค่าที่ 60 นาที) พบค่าสูงสุดหลักสองค่า ค่าแรกเกิดขึ้นหลังจาก 15 นาที และค่าที่สองเกิดขึ้นหลังจาก 45 นาทีของการผสมพันธุ์ หลังจากที่ค่าโดปามีนเพิ่มขึ้นครั้งสุดท้ายนี้ ค่าโดปามีนก็มีแนวโน้มกลับคืนสู่ค่าพื้นฐาน (ดูรูปที่2B )
พบภาพที่คล้ายคลึงกันในหนู RLA ที่ไม่เคยมีเพศสัมพันธ์เทียบกับหนู RLA ที่มีประสบการณ์ทางเพศแล้ว ที่จริงแล้ว คล้ายกับที่พบในหนู RHA ในหนู RLA ที่มีประสบการณ์ทางเพศก็พบรูปแบบตามเวลาที่มีลักษณะเฉพาะคือการเพิ่มขึ้นของโดปามีนนอกเซลล์หลักสามครั้ง: ครั้งแรกเมื่อไม่สามารถเข้าถึงตัวเมียได้ และอีกสองครั้งระหว่างการผสมพันธุ์ กล่าวคือ หลังจาก 15 นาทีและ 60 นาทีของการผสมพันธุ์ (ดูรูปที่2A,B ) โดยทั่วไปแล้ว ประสบการณ์ทางเพศดูเหมือนจะทำให้เกิดการเปลี่ยนแปลงที่ยั่งยืนมากขึ้นในรูปแบบตามเวลาของการปล่อยโดปามีนในหนูทั้งสองสายพันธุ์เมื่อเปลี่ยนจากสภาวะที่ไม่เคยมีเพศสัมพันธ์ไปสู่สภาวะที่มีประสบการณ์ทางเพศแล้ว
ดังแสดงในรูปที่2C–Fพบว่ามีความแตกต่างเพียงเล็กน้อยในความเข้มข้นของ DOPAC และ NA ระหว่างหนูที่ยังไม่เคยมีประสบการณ์และหนูที่มีประสบการณ์ของทั้งสองสายพันธุ์ อย่างไรก็ตาม สังเกตเห็นแนวโน้มที่ไม่สำคัญใน NA นอกเซลล์ที่มีค่าสูงกว่าในหนูที่มีประสบการณ์เมื่อเทียบกับหนูที่ยังไม่เคยมีประสบการณ์ ทั้งในสภาวะพื้นฐาน (ก่อนการนำหนูตัวเมียที่พร้อมผสมพันธุ์เข้ามา ดูตารางที่3 ) และในปริมาณ NA โดยรวม ดังที่แสดงโดยค่า AUC (ดูตารางที่4 ) ที่คำนวณจากความเข้มข้นนอกเซลล์ที่ได้จากการทดสอบทั้งหมด (ก่อนและระหว่างที่มีหนูตัวเมียที่พร้อมผสมพันธุ์อยู่) สุดท้าย รูปแบบตามเวลาของความเข้มข้นของ NA มีความคล้ายคลึงกันมากเมื่อเปรียบเทียบหนูที่มีประสบการณ์ของทั้งสองสายพันธุ์กับหนูที่ยังไม่เคยมีประสบการณ์ ซึ่งบ่งชี้ว่าประสบการณ์ทางเพศสามารถนำไปสู่การเพิ่มขึ้นโดยทั่วไปของ NA นอกเซลล์มากกว่าการเปลี่ยนแปลงในรูปแบบของการเพิ่มขึ้น (ดูรูปที่2E,F )
การเปลี่ยนแปลงในความเข้มข้นของสาร Dopamine และ Noradrenaline ใน mPFC Dialysates ที่ได้รับจาก RHA และ RLA หนูที่มีประสบการณ์ทางเพศและมีประสบการณ์ร่วมกับการเปลี่ยนแปลงพฤติกรรมทางเพศ
ความแตกต่างของความเข้มข้นของโดปามีนนอกเซลล์ DOPAC และ NA ในสารละลายไดอะไลเซตที่ได้จาก mPFC ที่พบในหนู RHA และ RLA ทั้งที่ยังไม่เคยมีเพศสัมพันธ์และเคยมีเพศสัมพันธ์มาแล้วระหว่างการทดสอบ (รูป ที่ 2 ) เกิดขึ้นพร้อมกับการเปลี่ยนแปลงในพารามิเตอร์ทางเพศต่างๆ ที่วัดได้ในช่วงสองขั้นตอนหลักของการทดลอง (เช่น ตัวเมียไม่สามารถเข้าถึงได้และตัวผู้สามารถเข้าถึงได้ ตามลำดับ) ซึ่งรวมถึงการแข็งตัวของอวัยวะเพศโดยไม่สัมผัส (รูปที่3A,B ) การขึ้นคร่อม (รูปที่3C,D ) การสอดใส่ (รูปที่3E,F ) และการหลั่งน้ำอสุจิ (รูปที่3G,H ) ความแตกต่างเหล่านี้พบได้ทั้งเมื่อพิจารณาสัตว์ทดลองทั้งหมดหรือเฉพาะสัตว์ที่ผสมพันธุ์จนถึงการหลั่งน้ำอสุจิเท่านั้น ในความเป็นจริง การวิเคราะห์เบื้องต้นของค่า AUC ของพารามิเตอร์เหล่านี้โดยใช้ ANOVA สองทาง (ดูตารางที่4สำหรับค่า AUC และตารางที่5สำหรับ ค่า Fและระดับนัยสำคัญ) ตามด้วยการวิเคราะห์แบบจุดต่อจุดของค่าพารามิเตอร์เหล่านี้ตลอดการทดลองโดยใช้ ANOVA แบบแฟคเตอร์สำหรับการวัดซ้ำ พบว่ามีผลหลักที่มีนัยสำคัญของสายพันธุ์ ประสบการณ์ และเวลา ปฏิสัมพันธ์ลำดับที่หนึ่งที่มีนัยสำคัญระหว่างสายพันธุ์ × เวลา และประสบการณ์ × เวลา และปฏิสัมพันธ์ลำดับที่สองที่มีนัยสำคัญสำหรับการขึ้นคร่อม (ดูตารางที่6สำหรับ ค่า Fและระดับนัยสำคัญ) ดังนั้น สอดคล้องกับการศึกษาครั้งก่อน ( Sanna et al., 2015 ): (i) หนู RHA ที่ไม่เคยมีประสบการณ์ทางเพศแสดงการแข็งตัวของอวัยวะเพศแบบไม่สัมผัส การขึ้นคร่อม การสอดใส่ และการหลั่งน้ำอสุจิมากกว่าหนู RLA ที่เป็นคู่กัน (ii) หนู RHA ที่มีประสบการณ์ทางเพศแสดงจำนวนการแข็งตัวของอวัยวะเพศแบบไม่สัมผัส การสอดใส่ และการหลั่งน้ำอสุจิมากกว่าหนู RLA ที่เป็นคู่กัน และ (iii) หนูทดลองที่มีประสบการณ์ทางเพศทั้งสองสายพันธุ์ โดยเฉพาะหนู RLA แสดงให้เห็นการแข็งตัวของอวัยวะเพศ การสอดใส่ และการหลั่งน้ำอสุจิโดยไม่ต้องสัมผัสมากกว่าหนูที่ยังไม่เคยมีประสบการณ์ทางเพศ อันที่จริง ในขณะที่ในหนู RHA การเปลี่ยนแปลงส่วนใหญ่ที่เกิดจากประสบการณ์ทางเพศเกิดขึ้นในระยะเวลามากกว่าความถี่ของพฤติกรรม (เช่น หนูที่มีประสบการณ์จะผสมพันธุ์ส่วนใหญ่ในช่วงครึ่งแรกของการทดสอบ ในขณะที่หนูที่ยังไม่เคยมีประสบการณ์แสดงแนวโน้มการผสมพันธุ์ที่คล้ายกันตลอดการทดสอบ) ในหนู RLA การปรับปรุงพฤติกรรมทางเพศโดยทั่วไปที่เด่นชัดกว่า โดยเฉพาะอย่างยิ่งในด้านสมรรถภาพทางเพศ เกิดขึ้นจากประสบการณ์ทางเพศ ดังที่เปิดเผยโดยการเปลี่ยนแปลงของค่าพารามิเตอร์การผสมพันธุ์ในหนู RLA ที่มีประสบการณ์เมื่อเทียบกับหนูที่ยังไม่เคยมีประสบการณ์
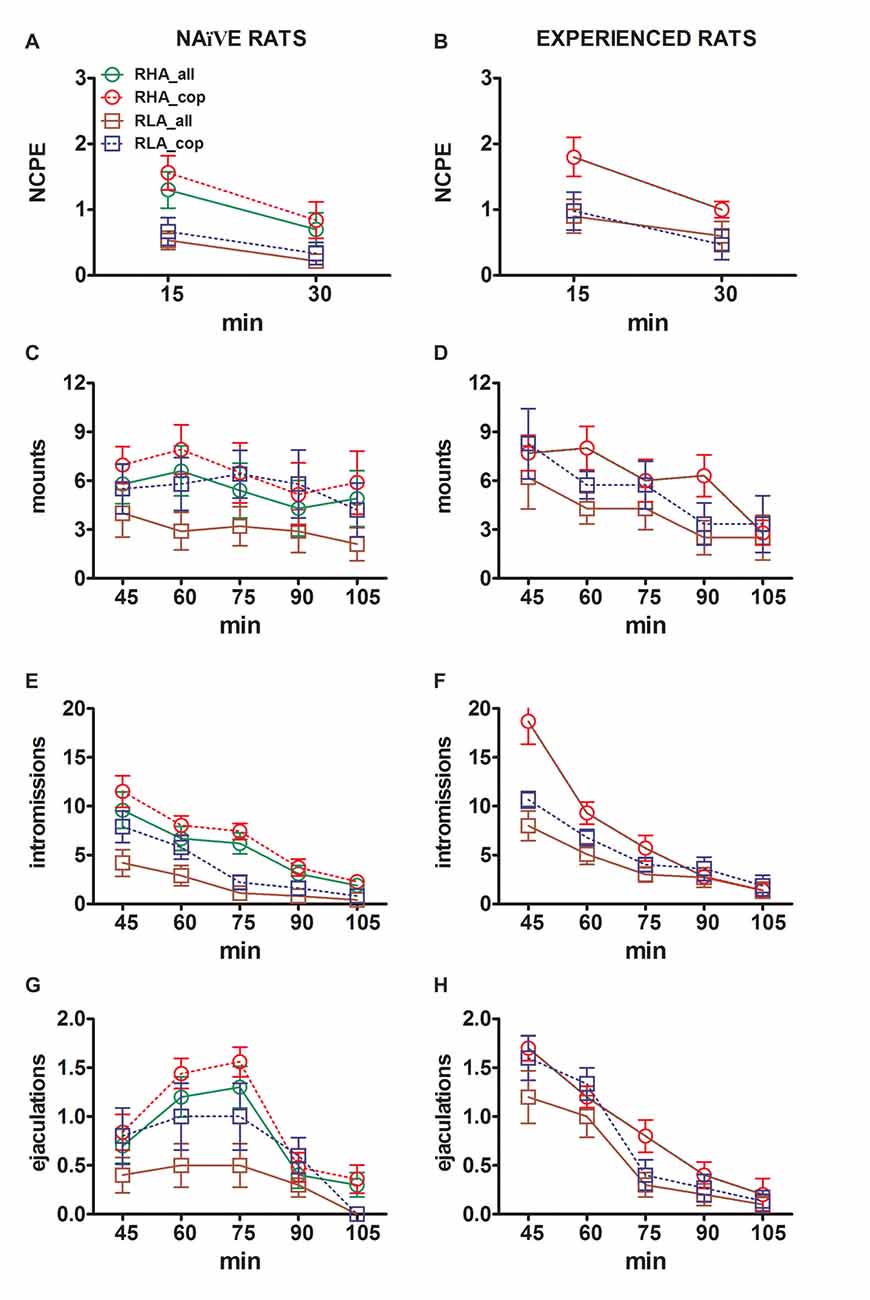 รูป 3. การเปลี่ยนแปลงจำนวนของการแข็งตัวของอวัยวะเพศชายแบบไม่สัมผัส (NCPE), การติดตั้ง, การเกิดอาการมึนงงและการหลั่งจากบันทึกทางเพศ (A, C, E, G) และหนูที่มีประสบการณ์ RHA และ RLA (B, D, F, H) ในระหว่างการทดลอง microdialysis รายงานในรูปที่ 2. เงื่อนไขการทดลองทั้งหมดเหมือนกันกับที่อธิบายไว้ในคำอธิบายแผนภูมิ 2. ค่าหมายถึง± SEM ของค่าที่ได้รับจากหนู 12 ทั้งหมดต่อกลุ่ม (รวมถึงที่ได้รับคะแนนเต็มเวลา RHA = เส้นสีเขียวทึบ, RLA = เส้นสีน้ำตาลทึบ) หรือผู้ที่เกี่ยวข้องกับการพุ่งออกมาเท่านั้น (RHA = เส้นสีแดงประ ; RLA = เส้นสีน้ำเงินเส้นประ) ในหนูที่มีประสบการณ์ RHA สัตว์ทุกตัวจะมีเพศสัมพันธ์และค่าเหมือนกัน เนื่องจากไม่มีการโต้ตอบที่สำคัญระหว่างปัจจัยบรรทัดหนู (RHA กับ RLA) ปัจจัยระดับประสบการณ์ทางเพศ (naïveกับประสบการณ์) และเวลาถูกพบโดยการวิเคราะห์ข้อมูลด้วย ANOVAs สองทางดังที่แสดงในตาราง 6, โพสต์เฉพาะกิจ ไม่มีการรายงานการเปรียบเทียบตามที่อธิบายไว้ในส่วน "วัสดุและวิธีการ", "สถิติ"
การสนทนา
การศึกษาครั้งนี้ยืนยันและขยายผลการค้นพบจากการศึกษาครั้งก่อนๆ ที่แสดงให้เห็นว่าหนู RHA และ RLA ซึ่งมีรูปแบบการรับมือที่แตกต่างกันอย่างเห็นได้ชัดเมื่อเผชิญกับสภาวะที่ไม่พึงประสงค์ ( Driscoll และ Bättig, 1982 ; Giorgi et al., 2003a ; Steimer และ Driscoll, 2003 ) แสดงรูปแบบพฤติกรรมที่แตกต่างกันเมื่อมีตัวเมียที่พร้อมผสมพันธุ์อยู่แต่เข้าถึงไม่ได้ และในระหว่างการทดสอบการผสมพันธุ์แบบคลาสสิก ( Sanna et al., 2014a , b , 2015 ) ดังนั้น การศึกษานี้จึงแสดงให้เห็นว่าหนู RHA ที่ไม่เคยมีประสบการณ์ทางเพศมาก่อน (ไม่เคยสัมผัสกับหนูตัวเมียที่พร้อมผสมพันธุ์มาก่อน) มีแรงจูงใจทางเพศสูงกว่าและมีสมรรถภาพทางเพศที่ดีกว่าเมื่อเทียบกับหนู RLA ที่ไม่เคยมีประสบการณ์ทางเพศมาก่อน เช่น หนู RHA แสดงจำนวนการแข็งตัวของอวัยวะเพศโดยไม่สัมผัสที่สูงกว่า (การแข็งตัวของอวัยวะเพศที่เกิดจากฟีโรโมนถือเป็นดัชนีของการกระตุ้นทางเพศ; Sachs et al., 1994 ; Sachs, 2000 ) และมีการเปลี่ยนแปลงเชิงรุกทางเพศที่แตกต่างกันในพารามิเตอร์การผสมพันธุ์หลายอย่างดังที่พบในการศึกษาครั้งก่อนๆ ( Sanna et al., 2014a , b , 2015 ) ความแตกต่างเหล่านี้ยังคงมีอยู่ในหนูสายพันธุ์โรมันทั้งสองสายพันธุ์หลังจากได้รับประสบการณ์ทางเพศแล้ว กล่าวคือ หลังจากที่พฤติกรรมทางเพศคงที่ด้วยการสัมผัสและการทดสอบการผสมพันธุ์กับหนูตัวเมียที่พร้อมผสมพันธุ์ห้าครั้ง การศึกษานี้ยังแสดงให้เห็นเป็นครั้งแรกว่า ในหนูสายพันธุ์ RHA และ RLA ทั้งในระยะที่ไม่เคยมีประสบการณ์ทางเพศและระยะที่มีประสบการณ์ทางเพศ การแข็งตัวของอวัยวะเพศโดยไม่ต้องสัมผัสและการมีปฏิสัมพันธ์ทางเพศ เกิดขึ้นพร้อมกับการเพิ่มขึ้นของความเข้มข้นของโดปามีนนอกเซลล์ (และสารเมตาโบไลต์หลัก DOPAC) และ NA ในสารละลายที่ได้จากการไมโครไดอะไลซิสในสมองจาก mPFC ของหนูสายพันธุ์โรมันทั้งสองสายพันธุ์ ที่น่าสนใจคือ การเพิ่มขึ้นของโดปามีนนอกเซลล์และ NA ใน mPFC ดูเหมือนจะเกี่ยวข้องกับความแตกต่างในลักษณะทางพันธุกรรมของหนูหรือระดับประสบการณ์ทางเพศ ดังนั้น ดังที่แสดงไว้อย่างละเอียดในส่วนผลลัพธ์ หนู RHA ทั้งที่ไม่เคยมีประสบการณ์ทางเพศและมีประสบการณ์ทางเพศ แสดงให้เห็นการเพิ่มขึ้นของโดปามีนนอกเซลล์และ NA ที่สูงกว่าและยาวนานกว่าเมื่อเปรียบเทียบกับหนู RLA ในทั้งระยะกระตุ้นและระยะสำเร็จของพฤติกรรมทางเพศ นอกจากนี้ หนูทดลองสายพันธุ์โรมันทั้งสองสายพันธุ์ที่มีประสบการณ์ทางเพศแล้ว แสดงให้เห็นถึงการเพิ่มขึ้นของโดปามีนและนอร์เอพิเนฟริน (NA) นอกเซลล์ใน mPFC ที่สูงกว่าและคงอยู่นานกว่าในทั้งสองช่วงของพฤติกรรมทางเพศ เมื่อเทียบกับหนูทดลองที่ยังไม่เคยมีประสบการณ์ทางเพศ สุดท้ายแล้ว ความแตกต่างทั้งหมดข้างต้นในระดับโดปามีนและนอร์เอพิเนฟริน (NA) นอกเซลล์ใน mPFC นั้นมีความสัมพันธ์กับความแตกต่างในพารามิเตอร์ทางพฤติกรรมทางเพศอย่างชัดเจน เช่น หนูทดลองสายพันธุ์โรมันทั้งสองสายพันธุ์ที่มีประสบการณ์ทางเพศแล้ว แสดงให้เห็นถึงแรงจูงใจทางเพศที่สูงกว่าและประสิทธิภาพในการผสมพันธุ์ที่ดีกว่า เมื่อเทียบกับหนูทดลองที่ยังไม่เคยมีประสบการณ์ทางเพศ และหนูทดลองสายพันธุ์ RHA ที่ยังไม่เคยมีประสบการณ์ทางเพศและมีประสบการณ์ทางเพศแล้ว แสดงให้เห็นถึงแรงจูงใจทางเพศที่สูงกว่าและประสิทธิภาพในการผสมพันธุ์ที่ดีกว่า เมื่อเทียบกับหนูทดลองสายพันธุ์ RLA ที่ยังไม่เคยมีประสบการณ์ทางเพศและมีประสบการณ์ทางเพศแล้ว
สำหรับการเพิ่มขึ้นของโดปามีนนอกเซลล์ที่พบใน mPFC dialysate ในระหว่างกิจกรรมทางเพศการเพิ่มขึ้นครั้งแรกเกิดขึ้นในนาทีแรก 15 หลังจากการแนะนำของเพศหญิงที่รับได้ทางเพศในอุปกรณ์จับคู่เมื่อเพศหญิงไม่สามารถเข้าถึงได้ ในสภาพนี้ไม่แข็งตัวอวัยวะเพศชายติดต่อ การเพิ่มขึ้นของโดปามีนนอกเซลล์ที่สองและใหญ่กว่านั้นเกิดขึ้นในช่วง 15 นาทีแรกหลังจากที่เพศเมียสามารถเข้าถึงได้เพื่อการสังวาส ที่น่าสนใจในขณะที่ภาวะโดปามีนนอกเซลล์เพิ่มขึ้นส่วนใหญ่ในส่วนแรกของการทดสอบกับหญิงที่สามารถเข้าถึงได้โดยมีแนวโน้มที่จะกลับไปที่ค่าฐานในส่วนที่สองในโดปามีนสภาพประสบการณ์ทางเพศยังคงเพิ่มขึ้นตลอดการทดสอบ หลังจาก 45 – 60 ขั้นต่ำของการมีเพศสัมพันธ์ในทั้งสองบรรทัดหนูโรมัน
นอกเหนือจากความแตกต่างข้างต้นในโดปามีนนอกเซลล์ในช่วงระยะกิจกรรมทางเพศที่แตกต่างกันระหว่าง RHA และ RLA ในสภาพทางเพศและประสบการณ์พบว่าการศึกษานี้แสดงให้เห็นถึงความแตกต่างที่สำคัญและคาดไม่ถึงในความเข้มข้นของสาร DOPAC ค่าฐาน) และหลังการเปิดตัวของหญิงเปิดกว้างในอุปกรณ์จับคู่ ดังนั้นค่าฐานของ extracellular DOPAC ใน mPFC dialysate พบในหนู RHA จะมีค่า 2.6-fold สูงกว่าที่พบในหนู RLA ความแตกต่างระหว่างหนู RHA และ RLA นี้เกิดขึ้นและคงอยู่ในสภาวะไร้สมรรถภาพทางเพศและมีประสบการณ์ทั้งๆที่มีความแตกต่างเล็กน้อยในค่าฐานของโดปามีนนอกเซลล์ใน mPFC dialysates ที่ได้รับจากหนูโรมันสองสายในเงื่อนไขการทดลองเหล่านี้ เมื่อนำมารวมกันความแตกต่างเหล่านี้อาจบ่งบอกถึงการเปลี่ยนแปลงโดปามีนที่แตกต่างกันที่ระดับของ mPFC ระหว่างสองสายหนูโรมัน ดังนั้นความเข้มข้นของ DOPAC มักจะสะท้อนปริมาณของโดปามีนที่ปล่อยออกมาและกลับคืนมาอีกครั้งโดยขั้วประสาทโดปามีนและเปลี่ยนเป็น DOPAC โดย monoaminooxydase (MAO; Carlsson, 1975) ดังนั้นความเข้มข้นของฐาน DOPAC ที่สูงกว่าที่พบในหนู RHA ชี้ให้เห็นว่าปริมาณโดปามีนในปริมาณที่สูงกว่านั้นถูกปล่อยออกมาและกลับคืนสู่สภาพเดิมโดยปลายประสาทโดปามีเซอร์คิคใน mPFC ของหนู RHA เช่นกิจกรรมพื้นฐานที่สูงขึ้น หนู ระดับโดปามีนที่สูงกว่า mesocortical dopaminergic ในหนู RHA นั้นยังได้รับการสนับสนุนจากความเข้มข้นของโดปามีนที่เพิ่มขึ้นในระหว่างกิจกรรมทางเพศใน mPFC dialysate จากหนู RHA ที่มีความสัมพันธ์ทางเพศ ในเรื่องนี้มันเกี่ยวข้องกับการระลึกว่าน้ำโดปามีนที่สูงกว่านั้นถือเป็นความรับผิดชอบอย่างน้อยก็ในบางส่วนของลักษณะที่แตกต่างและตรงข้ามกับพฤติกรรมหลายอย่างในหนู RHA และ RLA ดังนั้น RHA rats เป็น copers ที่ใช้งานสูงหุนหันพลันแล่นผู้แสวงหาความรู้สึกแปลกใหม่และมีแนวโน้มที่จะบริโภคและใช้ยาเสพติดหลายชั้นของการติดยาเสพติดในขณะที่ RLA rats เป็น copers ปฏิกิริยา hyperemotional และมีแนวโน้มที่จะพัฒนาอาการเหมือนซึมเศร้า (Zeier และคณะ 1978; Giorgi et al., 1994, 2003b, 2007; Corda et al., 1997, 2014; Escorihuela และคณะ, 1999; Steimer และ Driscoll, 2003; Lecca และคณะ, 2004; Giménez-Llort et al., 2005; Carrasco et al., 2008; Fattore et al., 2009; Moreno และคณะ 2010; Coppens et al., 2012; Díaz-Moránและคณะ, 2012; Sabariego และคณะ, 2013; Manzo et al., 2014a,b; Oliveras et al., 2015) รวมถึงแรงจูงใจทางเพศที่สูงขึ้นและสมรรถภาพทางเพศที่ดีขึ้นของหนูที่ไร้สมรรถภาพทางเพศและหนู RHA ที่มีประสบการณ์กับหนู RHA (Sanna และคณะ, 2015) การเพิ่มขึ้นของความเข้มข้นของโดปามีนนอกเซลล์ที่พบใน dialysate จาก mPFC ของหนูที่มีเพศสัมพันธ์และ RHA ที่มีประสบการณ์จะมีลักษณะคล้ายกับความเข้มข้นของโดปามีนนอกเซลล์ที่สูงกว่าที่พบใน dialysate จากนิวเคลียส (Sanna และคณะ, 2015) อย่างไรก็ตามที่ความแปรปรวนจาก mPFC ระดับพื้นฐานของสารกระตุ้นโดปามีนและ DOPAC ในไดอะลอกซิสจากนิวเคลียส accumbens ของหนูทั้งสองที่มีเพศสัมพันธ์และมีประสบการณ์ RHA และ RLA ไม่แตกต่างกันอย่างมีนัยสำคัญ (Sanna และคณะ, 2015) ดังนั้นปริมาณโดปามินอจิกที่มี mesolimbic สูงกว่าในนิวเคลียส accumbens ของหนูที่มีเชื้อเอชไอวีและมีประสบการณ์ RHA อาจถูกสรุปโดยความเข้มข้นของโดปามีนนอกเซลล์ที่สูงกว่าที่พบใน dialysates จากนิวเคลียส accumbens ของ RHA เมื่อเทียบกับคู่ RLA เพศหญิงและไม่ใช่จากกิจกรรม dopaminergic ฐานที่แตกต่างกันพบว่าระดับความเข้มข้นของ DOPAC ในหนู RHA และ RLA ตามลำดับสูงกว่าและต่ำกว่าตามลำดับพบว่าเกิดขึ้นใน mPFC ในการศึกษานี้ นี่ก็สอดคล้องกับผลลัพธ์ของรายงานก่อนหน้านี้แสดงให้เห็นว่าระดับโดปามีนนอกเซลล์ใน dialysate จาก mPFC ของหนู RHA พบสูงกว่าหนู RLA ในขณะที่ระดับโดปามีนที่คล้ายกันพบใน dialysate จากเปลือกของนิวเคลียส accumbens ของหนูทั้ง RHA และ RLA ภายใต้เงื่อนไขการทดลองที่แตกต่างกัน (D'Angio et al., 1988; Scatton และคณะ, 1988; Willig et al., 1991; Giorgi et al., 2003a, 2007) แม้จะมีความแตกต่างข้างต้นระหว่าง mPFC และนิวเคลียส accumbens ประสบการณ์ทางเพศดูเหมือนว่าจะผลิตใน mPFC เพิ่มขึ้นอีกต่อไปในรูปแบบชั่วคราวของการปลดปล่อยโดปามีนในทั้งสองเส้นโรมันหนูเมื่อผ่านจากไร้เดียงสาทางเพศถึงสภาพที่มีประสบการณ์ มักจะสูงกว่าในหนู RHA มากกว่าหนู RLA สิ่งนี้ค่อนข้างแตกต่างจากสิ่งที่พบในนิวเคลียส accumbens ซึ่งประสบการณ์ทางเพศมีแนวโน้มที่จะเปลี่ยนสารกระตุ้นโดปามีนนอกเซลล์เพิ่มขึ้นเป็นส่วนแรกของการทดสอบร่วมในหนู RHA ในขณะที่เพิ่มขึ้นตลอดการทดสอบการมีเพศสัมพันธ์ทั้งหมดในหนู RLASanna และคณะ, 2015).
เท่าที่เราทราบ งานวิจัยชิ้นนี้ยังแสดงให้เห็นเป็นครั้งแรกว่า ไม่เพียงแต่โดปามีนนอกเซลล์เท่านั้น แต่นอร์อะดรีนาลิน (NA) นอกเซลล์ก็เพิ่มขึ้นเช่นกันในระหว่างกิจกรรมทางเพศในของเหลวที่ได้จากการล้างสมองส่วน mPFC ของหนู RHA และ RLA เช่นเดียวกับที่พบในโดปามีน แต่ในกรณีนี้ยังมีความแตกต่างที่เกี่ยวข้องกับสายพันธุ์หนูโรมันและประสบการณ์ทางเพศด้วย โดยเฉพาะอย่างยิ่ง แตกต่างจากระดับโดปามีนพื้นฐานที่พบว่าคล้ายคลึงกันมากในของเหลวที่ได้จากการล้างสมองส่วน mPFC ของหนู RHA และ RLA ระดับพื้นฐานของนอร์อะดรีนาลินนอกเซลล์ในของเหลวที่ได้จากการล้างสมองส่วน mPFC ของหนู RHA สูงกว่าอย่างมีนัยสำคัญ (ประมาณ 2,5 เท่า) เมื่อเทียบกับหนู RLA สาเหตุของความแตกต่างเหล่านี้ยังไม่เป็นที่ทราบแน่ชัด แต่ดังที่ได้กล่าวไว้ข้างต้นสำหรับโดปามีนและ DOPAC ผลลัพธ์เหล่านี้อาจบ่งชี้ว่ามีโทนของนอร์อะดรีนาลินพื้นฐานที่สูงกว่าอย่างน้อยในเปลือกสมองส่วน mPFC ของหนู RHA เมื่อเทียบกับหนู RLA ระดับนอร์อะดรีเนอร์จิกที่สูงขึ้นดังกล่าวอาจมีส่วนเกี่ยวข้องกับลักษณะพฤติกรรมที่แตกต่างกันและมักจะตรงกันข้ามกันในหนู RHA และ RLA ดังที่ได้กล่าวไว้ข้างต้นเกี่ยวกับโดปามีน หลักฐานเพิ่มเติมที่สนับสนุนว่าหนู RHA มีระดับนอร์อะดรีเนอร์จิกสูงกว่าหนู RLA ใน mPFC มาจากผลการวิจัยที่แสดงให้เห็นว่าความแตกต่างของระดับนอร์อะดรีเนอร์จิกนอกเซลล์ในสภาวะปกติยังคงอยู่แม้ในระหว่างกิจกรรมทางเพศ ทั้งในสภาวะที่ยังไม่เคยมีเพศสัมพันธ์และสภาวะที่เคยมีเพศสัมพันธ์แล้ว ตัวอย่างเช่น ระดับนอร์อะดรีเนอร์จิกนอกเซลล์ในของเหลวที่ได้จากการล้าง mPFC เพิ่มขึ้นในหนู RHA เมื่อสัมผัสกับตัวเมียที่เข้าถึงไม่ได้และตลอดช่วงเวลาการผสมพันธุ์มากกว่าในหนู RLA ซึ่งระดับนอร์อะดรีเนอร์จิกเพิ่มขึ้นเพียง 15 นาทีแรกของการผสมพันธุ์ หลังจากนั้นระดับนอร์อะดรีเนอร์จิกก็กลับสู่ระดับปกติ การเปลี่ยนแปลงของระดับนอร์อะดรีเนอร์จิกนอกเซลล์เหล่านี้พบได้ทั้งในสภาวะที่ยังไม่เคยมีเพศสัมพันธ์และสภาวะที่เคยมีเพศสัมพันธ์แล้ว แต่การเพิ่มขึ้นของระดับนอร์อะดรีเนอร์จิกนั้นสูงกว่าในหนู RHA และ RLA ที่เคยมีเพศสัมพันธ์แล้วเมื่อเทียบกับหนูที่ยังไม่เคยมีเพศสัมพันธ์ ดังนั้น ประสบการณ์ทางเพศจึงกระตุ้นการทำงานของระบบนอร์อะดรีเนอร์จิกใน mPFC ของหนู RHA และในระดับที่น้อยกว่าในหนู RLA ดังที่ได้กล่าวถึงไปแล้วสำหรับโดปามีน ระดับการทำงานของระบบนอร์อะดรีเนอร์จิกและโดปามีนที่สูงขึ้นใน mPFC ของหนู RHA เมื่อเทียบกับหนู RLA นั้นสมควรได้รับการพิจารณา อันที่จริง มีรายงานว่าการทำงานของระบบนอร์อะดรีเนอร์จิกใน mPFC สามารถส่งผลต่อการปล่อยโดปามีนผ่านกลไกต่างๆ (ตัวอย่างเช่น ดูCarboni et al., 1990 , 2006 ; Gresch et al., 1995 ; Westernik et al., 1998และเอกสารอ้างอิงในนั้น) หนึ่งในนั้นเกี่ยวข้องกับการทำงานของ NET ซึ่งแสดงให้เห็นว่าสามารถจับกับโดปามีนได้ด้วยความสัมพันธ์ที่สูงกว่าการจับกับ NA ในไซแนปโทโซมที่ได้จากโฮโมจีเนตของ PFC ( Horn, 1973 ) หากกระบวนการนี้เกิดขึ้นใน mPFC ในร่างกายจริงโดปามีนที่ถูกปล่อยออกมาใน mPFC อาจถูกจับกลับคืนมาได้ไม่เพียงแต่โดยปลายประสาทโดปามีนเท่านั้น แต่ยังรวมถึงปลายประสาทนอร์อะดรีเนอร์จิกด้วยความเร็วที่สูงกว่านอร์อะดรีเนอร์จิกเสียอีก ซึ่งอาจทำให้มีการปล่อยโดปามีนจากปลายประสาทโดปามีนเพิ่มขึ้น (เช่น โทนโดปามีนที่เพิ่มขึ้น) เพื่อชดเชยปริมาณโดปามีนที่ถูกกำจัดออกจากช่องว่างไซแนปส์ ดังนั้น โทนนอร์อะดรีเนอร์จิกที่สูงขึ้นที่พบในหนู RHA อาจมีส่วนช่วยอย่างน้อยบางส่วนต่อโทนโดปามีนที่สูงขึ้นใน mPFC ของหนู RHA เมื่อเทียบกับหนู RLA จำเป็นต้องมีการศึกษาเพิ่มเติมเพื่อตรวจสอบความเป็นไปได้นี้ ที่น่าสังเกตคือ ความแตกต่างของกิจกรรมนอร์อะดรีเนอร์จิกที่ระบุในงานวิจัยนี้ใน mPFC ระหว่างหนู RHA และ RLA อาจมีบทบาทในปฏิกิริยาที่แตกต่างกันต่อการรักษาด้วยยาต้านซึมเศร้า อันที่จริง หนู RHA ถือเป็นแบบจำลองของความยืดหยุ่น และหนู RLA เป็นแบบจำลองของความเปราะบางต่อภาวะซึมเศร้า ดังนั้น การรักษาแบบเฉียบพลันหรือเรื้อรังด้วยยาต้านอาการซึมเศร้า เช่น เดซิปรามีน ฟลูออกเซทีน และคลอริมิพรามีน ล้วนช่วยปรับปรุงการตอบสนองทางพฤติกรรมในการทดสอบการว่ายน้ำแบบบังคับในหนู RLA ได้อย่างมีนัยสำคัญ โดยไม่ส่งผลกระทบต่อการตอบสนองของหนู RHA ( Piras et al., 2010 , 2014 )
ในที่สุดการศึกษานี้ยืนยันและขยายผลการวิจัยก่อนหน้านี้แสดงให้เห็นว่า mPFC มีส่วนร่วมในการควบคุมพฤติกรรมทางเพศแม้ว่าบทบาทที่แน่นอนของพื้นที่สมองนี้ในพฤติกรรมทางเพศอยู่ไกลจากความชัดเจน (Fernández-Guasti และคณะ, 1994; Agmo และ Villalpando, 1995; Agmo et al., 1995; Hernández-Gonzáles et al., 1998, 2007; Kakeyama และคณะ, 2003; Balfour et al., 2006; Afonso et al., 2007; Davis et al., 2010; Febo, 2011) เมื่อเร็ว ๆ นี้การคัดเลือกเซลล์ที่ถูกยิงใน mPFC ในระหว่างการเข้าใกล้พฤติกรรมของหนูตัวผู้ที่มีต่อเพศหญิงที่ไม่สามารถเข้าถึงได้ทางเพศนั้นถูกแสดงโดยใช้กระบวนทัศน์การบันทึกเซลล์เดียวFebo, 2011) น่าสนใจเซลล์ประสาทที่ไม่ตอบสนองในระหว่างการแสดงออกครั้งแรกของผู้ชายกับหญิงที่เปิดกว้างไม่สามารถเข้าถึงได้กลายเป็นที่ใช้งานในช่วงการแสดงออกที่สองราวกับว่าประสบการณ์ก่อนหน้านี้สามารถทำให้เกิดการเปลี่ยนแปลงพลาสติกที่นำไปสู่การตอบสนองเชิงพฤติกรรม อย่างไรก็ตามรอยโรคด้วยกรดไอโซเทนิกของ mPFC พบว่าไม่สามารถเปลี่ยนพฤติกรรมทางเพศของหนูเพศผู้กับเพศหญิงที่รับได้ทางเพศ อย่างไรก็ตามความสามารถในการสร้างความเกลียดชังที่มีต่อกิจกรรมทางเพศเมื่อพบว่าถูกจับคู่กับสิ่งเร้า aversive ถูกยกเลิกอย่างสมบูรณ์ในสัตว์ที่มีแผลเหล่านี้ (Davis et al., 2010) สิ่งนี้ชี้ให้เห็นว่าการเปิดใช้งาน mPFC ในระหว่างพฤติกรรมทางเพศมีบทบาทในการบูรณาการข้อมูลภายนอกและภายในสำหรับการดำเนินการและการควบคุมพฤติกรรมที่มุ่งเป้าไปที่เป้าหมายมากกว่าในการแสดงออกของการตอบสนองโดยธรรมชาติต่อผู้สนับสนุนธรรมชาติ ไปที่และเกรซ 2005) มีความสำคัญมากกว่าสำหรับงานนี้การศึกษาหลายชิ้นแสดงให้เห็นว่าสมองมีส่วนเกี่ยวข้องกับแรงจูงใจทางเพศและพฤติกรรมทางเพศเช่นนิวเคลียส accumbens, หน้าท้องพื้นที่ tegmental, พื้นที่ preoptic อยู่ตรงกลาง, นิวเคลียสเตียงของ Stria terminalis, basolateral amygdala และ parvocellular subparafascicular thalamic จาก mPFC ระหว่างกิจกรรมทางเพศ (ดู Balfour et al., 2006) พื้นที่สมองเหล่านี้หลายแห่งมีส่วนร่วมในวงจรประสาทที่ซับซ้อนที่เกี่ยวข้องกับการควบคุมพฤติกรรมทางเพศจากแรงจูงใจทางเพศและการให้รางวัลกับสมรรถภาพทางเพศ วงจรนี้รวมถึงเซลล์ประสาท oxytocinergic ที่เกิดขึ้นใน PVN ของ hypothalamus (PVN) และโครงการไปยังพื้นที่ tegmental หน้าท้อง / mesorticamalcic, นิวเคลียส accumbens, ฮิปโปแคมปัส, amygdala, PFC, นิวเคลียสเตียงของ stria terminal, ไขกระดูก เซลล์ประสาทที่ยื่นออกมาจากพื้นที่หน้าท้องไปสู่นิวเคลียส accumbens และ PFC, incertohypothalamic dopaminergic dopaminergic เซลล์ประสาทและเซลล์ประสาท glutamatergic ที่มีส่วนร่วมในระดับท้องถิ่นและระบบในหลายพื้นที่ของวงจร (ดู Melis และ Argiolas, 1995, 2011; Melis et al., 2003, 2007, 2009, 2010; Succu et al., 2007, 2008, 2011) ดังนั้นการเพิ่มขึ้นของโดปามีนนอกเซลล์ (แต่ยังรวมถึงของ NA) ใน dialysates จาก mPFC ที่เห็นในระหว่างกิจกรรมทางเพศอาจบ่งชี้ว่า mPFC เป็นส่วนหนึ่งของวงจรนี้นั่นคือเซลล์ประสาทโดปามีนที่มีส่วนร่วมในการควบคุมกิจกรรมทางเพศด้วยกัน กับ noradrenergic, mesolimbic dopaminergic, oxytocinergic และ glutamatergic เซลล์ประสาทแม้ว่ามันดูเหมือนจะไม่จำเป็นอย่างยิ่งสำหรับการแสดงออกของพฤติกรรมทางเพศ (Davis et al., 2010) ตามสมมติฐานนี้การศึกษาครั้งนี้แสดงให้เห็นว่าความแตกต่างของโดปามีนและการปลดปล่อย NA ใน mPFC ระหว่างกิจกรรมทางเพศเกิดขึ้นพร้อมกับความแตกต่างของจำนวนการแข็งตัวของอวัยวะเพศชายแบบไม่สัมผัสและการเปลี่ยนแปลงพารามิเตอร์ร่วม ความอยากอาหารและระยะการบริโภคที่เกี่ยวข้องกับแรงจูงใจทางเพศที่สูงขึ้นและการแสดงออกที่ดีขึ้นทั้งในสายหนูโรมันและในสภาวะทางเพศและประสบการณ์
การอภิปรายที่กล่าวมาข้างต้นนั้นขึ้นอยู่กับการเพิ่มขึ้นของสารโดปามีนนอกเซลล์ที่รู้จักกันดีซึ่งเกิดขึ้นในนิวเคลียส accumbens ของหนูเพศผู้ในระหว่างกิจกรรมทางเพศ (Pfaus et al., 1990; Pleim et al., 1990; Pfaus และ Phillips, 1991; Damsma et al., 1992; Wenkstern และคณะ, 1993) อย่างไรก็ตามโดปามีนและสารสื่อประสาทอื่น ๆ อาจถูกปลดปล่อยใน mPFC (และในนิวเคลียส accumbens) ในเงื่อนไขการทดลองอื่น ๆ เช่นในระหว่างความเครียดหรือการเผชิญกับมัน (Thierry et al., 1976; Fadda et al., 1978) ซึ่งไม่เกี่ยวข้องกับพฤติกรรมทางเพศอย่างเคร่งครัด ดังนั้นหนึ่งอาจยืนยันว่าการเพิ่มโดปามีนที่พบในโดปามีนนอกเซลล์ใน mPFC (การศึกษานี้) หรือในนิวเคลียส accumbens (Sanna และคณะ, 2015) มีความสัมพันธ์มากขึ้นกับความเครียดที่สองหรือการเผชิญความเครียดและ / หรือการมีปฏิสัมพันธ์กับผู้หญิงที่เปิดรับทางเพศสัมพันธ์มากกว่ากิจกรรมทางเพศ สิ่งนี้อาจมีความเกี่ยวข้องบางอย่างในหนู RHA และ RLA ซึ่งแสดงรูปแบบการเผชิญปัญหาที่แตกต่างกันอย่างชัดเจนและการกระตุ้นการทำงานของต่อมใต้สมองต่อมหมวกไตต่อมใต้สมองที่แตกต่างกันในการตอบสนองต่อสภาวะ aversive (หนู RLA แสดงการเปิดใช้งานของแกนนี้ Carrasco et al., 2008; Díaz-Moránและคณะ, 2012) สิ่งนี้ยังเพิ่มความเป็นไปได้ที่ฮอร์โมนความเครียด (เช่น corticosteroids) อาจมีผลต่อกิจกรรม dopaminergic ใน mPFC และพื้นที่สมองอื่น ๆ เช่นกัน อันที่จริงหนู RLA นั้นเป็นตำรวจที่ทำปฏิกิริยาและแสดงพฤติกรรม hyperemotional ที่โดดเด่นด้วยความดันโลหิตต่ำและการแช่แข็งในขณะที่หนู RHA แสดงพฤติกรรมการเผชิญปัญหาเชิงรุกที่มุ่งควบคุมความเครียดDriscoll และBättig, 1982; Willig et al., 1991; Escorihuela และคณะ, 1999; Steimer และ Driscoll, 2003; Giorgi et al., 2007). แม้ว่าจะไม่สามารถแยกแยะได้อย่างสมบูรณ์ว่าสิ่งนี้อาจเกิดขึ้นในหนูที่ไร้เดียงสาทางเพศ (ซึ่งไม่เคยมีปฏิสัมพันธ์กับตัวเมียที่เปิดกว้างมาก่อน) และในหนู RLA ที่ไร้เดียงสาทางเพศโดยเฉพาะ (ดูด้านบน) ก็ไม่น่าเป็นไปได้ ในเงื่อนไขการทดลองของเราเป็นไปได้ทั้งหมดเพื่อหลีกเลี่ยงความเครียดทุกประเภท (ดูหัวข้อ "วัสดุและวิธีการ") และการทดลองจัดขึ้นในลักษณะที่ผู้ชายไม่โต้ตอบกับผู้หญิงทันที แต่หลังจากแสดงให้เธอเห็นแล้ว 30 นาที ในระหว่างที่โดพามีนเพิ่มขึ้นที่วัดได้จะต่ำกว่าที่เกิดขึ้นระหว่างการมีปฏิสัมพันธ์ทางเพศมาก หากพบการเพิ่มขึ้นของโดปามีนใน mPFC (และในนิวเคลียสแอคคัมเบน) ของหนูโรมัน (RHA ที่ไร้เดียงสาและ RLA ที่ไม่มีเพศมีระดับของโดพามีนนอกเซลล์พื้นฐานในไดอัลดีเสทจาก mPFC และนิวเคลียสแอคคัมเบนซึ่งคล้ายกันมาก) นั้นเป็นรองจริงๆ ความเครียดเนื่องจากหรือการเผชิญกับการมี / ปฏิสัมพันธ์กับเพศหญิง: (i) การเพิ่มขึ้นของโดปามีนจะพบได้สูงขึ้นมากในช่วงแรกของเวลาที่ตัวผู้ถูกวางต่อหน้าตัวเมียและไม่ช้ากว่านั้น ตามที่พบในระหว่างการมีเพศสัมพันธ์ และ (ii) การเพิ่มขึ้นของโดปามีนคาดว่าจะหายไปหรือลดลงอย่างมากหลังจากได้มาซึ่งกิจกรรมทางเพศที่มั่นคงนั่นคือเมื่อกระบวนการเรียนรู้ (รวมถึงการรับมือกับสิ่งแปลกใหม่) เสร็จสิ้นและมีบทบาทเพียงเล็กน้อยในการดำเนินการทางเพศ กิจกรรมในขณะที่ในทางตรงกันข้ามยังคงเกิดขึ้นเมื่อมีกิจกรรมทางเพศซ้ำ ๆ กล่าวอีกนัยหนึ่งโดปามีนนอกเซลล์ใน mPFC (และในนิวเคลียส accumbens) จะเพิ่มขึ้นเสมอในระหว่างการมีเพศสัมพันธ์แม้ว่าจะได้เรียนรู้พฤติกรรมทางเพศแล้วก็ตาม จำเป็นต้องมีการศึกษาเพิ่มเติมเพื่อชี้แจงบทบาทการทำงานของการเพิ่มขึ้นของกิจกรรมโดปามีนใน mPFC (และในนิวเคลียส accumbens โปรดดูหัวข้อ "บทนำและการอ้างอิง" ในนั้น)
โดยสรุปแล้ว การศึกษานี้แสดงให้เห็นเป็นครั้งแรกว่า การมีอยู่ และโดยเฉพาะอย่างยิ่ง การมีปฏิสัมพันธ์กับหนูเพศเมียที่พร้อมผสมพันธุ์ นำไปสู่การเพิ่มขึ้นของโดปามีนและนอร์เอพิเนฟริน (NA) ในของเหลวที่ได้จากการล้างสมองส่วน mPFC ของหนู RHA และ RLA ที่ไม่เคยมีประสบการณ์ทางเพศ (ไม่เคยสัมผัสกับสิ่งเร้าทางเพศมาก่อน) และหนูที่มีประสบการณ์ทางเพศ (ซึ่งผ่านการทดสอบการผสมพันธุ์เบื้องต้น 5 ครั้งและแสดงพฤติกรรมทางเพศที่คงที่) ซึ่งแสดงให้เห็นถึงรูปแบบการรับมือกับสภาวะที่ไม่พึงประสงค์ที่แตกต่างกันอย่างเห็นได้ชัด และรูปแบบพฤติกรรมการผสมพันธุ์กับหนูเพศเมียที่พร้อมผสมพันธุ์ที่แตกต่างกันด้วยเช่นกัน ดังนั้น จึงพบว่าความเข้มข้นของโดปามีนและนอร์เอพิเนฟรินในของเหลวที่ได้จากการล้างสมองของหนู RHA ที่ไม่เคยมีประสบการณ์ทางเพศและหนูที่มีประสบการณ์ทางเพศสูงกว่าเมื่อเปรียบเทียบกับหนู RLA ในช่วงทั้งระยะคาดการณ์และระยะสำเร็จของกิจกรรมทางเพศ ผลลัพธ์เหล่านี้อาจเกิดจากระดับโดปามีนและนอร์อะดรีนาลินใน mPFC ของหนู RHA ที่สูงกว่าหนู RLA ดังที่รายงานไว้สำหรับโดปามีนในนิวเคลียสแอคคัมเบนส์ ( Sanna et al., 2015 ) ยิ่งไปกว่านั้น ยังพบว่าโดปามีนและนอร์อะดรีนาลินในเซลล์นอกเซลล์ของ mPFC สูงกว่าในหนู RHA ที่มีประสบการณ์ทางเพศ และในระดับที่น้อยกว่าในหนู RLA เมื่อเทียบกับหนูที่ยังไม่เคยมีประสบการณ์ทางเพศ ทั้งในสภาวะปกติและในระหว่างช่วงกระตุ้นและช่วงจบพฤติกรรมทางเพศ สิ่งนี้ชี้ให้เห็นว่าประสบการณ์ทางเพศกระตุ้นกระบวนการเปลี่ยนแปลงโครงสร้างที่ช่วยเพิ่มการส่งสัญญาณประสาทของโดปามีนและนอร์อะดรีนาลินใน mPFC ดังเช่นที่พบสำหรับโดปามีนในนิวเคลียสแอคคัมเบนส์ของหนูโรมันทั้งสองสายพันธุ์ ( Sanna et al., 2015 ) ความแตกต่างข้างต้นในการส่งสัญญาณประสาทโดปามีนและนอร์อะดรีนาลีนใน mPFC ของหนูสายพันธุ์โรมันทั้งสองสายพันธุ์ อาจมีบทบาทไม่เพียงแต่ในรูปแบบพฤติกรรมทางเพศที่แตกต่างกันเท่านั้น แต่ยังรวมถึงลักษณะพฤติกรรมที่แตกต่างกันและมักจะตรงกันข้ามซึ่งเป็นลักษณะเฉพาะของหนูทั้งสองสายพันธุ์นี้ด้วย
ผลงานของผู้เขียน
FS, AA, MRM, OG และ MGC ออกแบบโครงการ FS และ JB ออกแบบดำเนินการและวิเคราะห์ข้อมูลจากพฤติกรรมทางเพศและการทดลอง microdialysis MAP, OG และ MGC เลือกและเลี้ยงหนูโรมัน FS, AA, MRM, OG และ MGC ดูแลการศึกษา FS, AA, MRM, OG และ MGC เขียนต้นฉบับ ผู้เขียนทั้งหมดกล่าวถึงผลลัพธ์และแสดงความคิดเห็นต้นฉบับ
การฝากและถอนเงิน
งานนี้ได้รับการสนับสนุนบางส่วนโดยทุนจากกระทรวงการต่างประเทศอิตาลีและการวิจัย (MIUR) (ความเป็นอิสระทางวิทยาศาสตร์ของนักวิจัยรุ่นใหม่, SIR 2014, หมายเลขรหัส RBSI14IUX7) ถึง FS, จากเขตปกครองตนเองของซาร์ดิเนีย (LR 7 / 2007 ,“ การส่งเสริมการวิจัยทางวิทยาศาสตร์และนวัตกรรมทางเทคโนโลยีในซาร์ดิเนีย”, กองทุนเพื่อสังคมแห่งยุโรป, 2007 – 2013, รหัสโครงการ CRP-59842) ถึง OG, และจากมหาวิทยาลัย Cagliari ถึง AA, MRM, FS, OG และ MGC
คำชี้แจงความขัดแย้งทางผลประโยชน์
ผู้เขียนประกาศว่าการวิจัยได้ดำเนินการในกรณีที่ไม่มีความสัมพันธ์ทางการค้าหรือทางการเงินใด ๆ ที่อาจตีความได้ว่าเป็นความขัดแย้งทางผลประโยชน์ที่อาจเกิดขึ้น
กิตติกรรมประกาศ
Dr. Barbara Tuveri มหาวิทยาลัย Cagliari เพื่อที่อยู่อาศัยและการดูแลสัตว์
อ้างอิง
Afonso, VM, Sison, M., Lovic, V. และ Fleming, AS (2007). รอยโรคในคอร์เทกซ์พรีฟรอนทัลส่วนกลางในหนูตัวเมียส่งผลต่อพฤติกรรมทางเพศและพฤติกรรมความเป็นแม่ รวมถึงการจัดลำดับขั้นตอนของพฤติกรรมเหล่านั้นBehav. Neurosci. 121, 515–526. doi: 10.1037/0735-7044.121.3.515
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Agmo, A. และ Villalpando, A. (1995). สารกระตุ้นระบบประสาทส่วนกลางช่วยส่งเสริมพฤติกรรมทางเพศในหนูตัวผู้ที่มีรอยโรคในเยื่อหุ้มสมองส่วนหน้าด้านในBrain Res. 696, 187–193. doi: 10.1016/0006-8993(95)00853-i
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Agmo, A., Villalpando, A., Picker, Z. และ Fernández, H. (1995). รอยโรคในคอร์เทกซ์พรีฟรอนทัลส่วนกลางและพฤติกรรมทางเพศในหนูตัวผู้Brain Res. 696, 177–186. doi: 10.1016/0006-8993(95)00852-h
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Argiolas, A. และ Melis, MR (1995). การปรับเปลี่ยนการทำงานของระบบประสาทในการแข็งตัวของอวัยวะเพศชาย: ภาพรวมของบทบาทของสารสื่อประสาทและนิวโรเปปไทด์Prog. Neurobiol. 47, 235–255. doi: 10.1016/0301-0082(95)00020-8
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Argiolas, A. และ Melis, MR (2005). การควบคุมส่วนกลางของการแข็งตัวของอวัยวะเพศชาย: บทบาทของนิวเคลียสพาราเวนทริคูลาร์ของไฮโปทาลามัสProg. Neurobiol. 76, 1–21. doi: 10.1016/j.pneurobio.2005.06.002
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Argiolas, A. และ Melis, MR (2013). นิวโรเปปไทด์และการควบคุมส่วนกลางของพฤติกรรมทางเพศจากอดีตถึงปัจจุบัน: บทวิจารณ์Prog. Neurobiol. 108, 80–107. doi: 10.1016/j.pneurobio.2013.06.006
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Balfour, ME, Brown, JL, Yu, L. และ Coolen, LM (2006). การมีส่วนร่วมที่เป็นไปได้ของเส้นใยประสาทจากคอร์เทกซ์พรีฟรอนทัลส่วนกลางต่อการกระตุ้นระบบประสาทหลังพฤติกรรมทางเพศในหนูตัวผู้Neuroscience 137, 1259–1276. doi: 10.1016/j.neuroscience.2005.11.013
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Balfour, ME, Yu, L. และ Coolen, LM (2004). พฤติกรรมทางเพศและสัญญาณสิ่งแวดล้อมที่เกี่ยวข้องกับเพศกระตุ้นระบบเมโซลิมบิกในหนูตัวผู้Neuropsychopharmacology 29, 718–730. doi: 10.1038/sj.npp.1300350
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Beloate, LN, Omrani, A., Adan, RA, Webb, IC และ Coolen, LM (2016). การกระตุ้นเซลล์โดปามีนในบริเวณเท็กเมนตัมส่วนล่างระหว่างพฤติกรรมทางเพศของหนูตัวผู้ควบคุมการเปลี่ยนแปลงของระบบประสาทและความไวต่อ d-amphetamine หลังจากการงดเว้นการมีเพศสัมพันธ์J. Neurosci. 36, 9949–9961. doi: 10.1523/JNEUROSCI.0937-16.2016
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Berridge, K. และ Robinson, T. (1998). บทบาทของโดปามีนในการให้รางวัลคืออะไร: ผลกระทบต่อความสุข การเรียนรู้จากรางวัล หรือความโดดเด่นของสิ่งจูงใจ? Brain Res. Rev. 28, 309–369. doi: 10.1016/s0165-0173(98)00019-8
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
บิกนามิ, จี. (1965). การคัดเลือกอัตราสูงและอัตราต่ำของการปรับสภาพการหลีกเลี่ยงในหนู. พฤติกรรมสัตว์ 13, 221–227. doi: 10.1016/0003-3472(65)90038-2
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Broadhurst, PL และ Bignami, G. (1965). ผลกระทบเชิงสัมพันธ์ของการคัดเลือกทางจิตพันธุกรรม: การศึกษาสายพันธุ์หนูโรมันที่มีการหลีกเลี่ยงสูงและต่ำBehav. Res. Ther. 3, 273–280. doi: 10.1016/0005-7967(64)90033-6
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Carboni, E., Silvagni, A., Vacca, C., และ Di Chiara, G. (2006). ผลสะสมของการปิดกั้นตัวพา norepinephrine และ dopamine ต่อการเพิ่มขึ้นของ dopamine นอกเซลล์ในเปลือกนิวเคลียส accumbens, bed nucleus of stria terminalis และ prefrontal cortex. J. Neurochem. 96, 473–481. doi: 10.1111/j.1471-4159.2005.03556.x
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Carboni, E., Tanda, GL, Frau, R., และ Di Chiara, G. (1990). การปิดกั้นตัวขนส่งนอร์อะดรีนาลีนเพิ่มความเข้มข้นของโดปามีนนอกเซลล์ในคอร์เทกซ์ส่วนหน้า: หลักฐานที่แสดงว่าโดปามีนถูกดูดซึมในร่างกายโดยปลายประสาทนอร์อะดรีเนอร์จิก J. Neurochem. 55, 1067–1070. doi: 10.1111/j.1471-4159.1990.tb04599.x
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Carlsson, A. (1975). “การควบคุมการเผาผลาญโดปามีนผ่านตัวรับ” ในPre- and Post-Synaptic Receptorsบรรณาธิการ E. Usdin และ WE Bunney (นิวยอร์ก, NY: Marcel Deker), 49–65.
Carrasco, J., Márquez, C., Nadal, R., Tobeña, A., Fernández-Teruel, A. และ Armario, A. (2008). การจำแนกลักษณะส่วนประกอบส่วนกลางและส่วนปลายของแกนไฮโปทาลามัส-ต่อมใต้สมอง-ต่อมหมวกไตในหนูสายพันธุ์โรมันที่ผสมพันธุ์กันเองPsychoneuroendocrinology 33, 437–445. doi: 10.1016/j.psyneuen.2008.01.001
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Coppens, CM, de Boer, SF, Steimer, T. และ Koolhaas, JM (2012). ความหุนหันพลันแล่นและพฤติกรรมก้าวร้าวในหนูทดลองสายพันธุ์โรมันที่มีการหลีกเลี่ยงสูงและต่ำ: ความแตกต่างพื้นฐานและการเปลี่ยนแปลงที่เกิดจากความเครียดทางสังคมในวัยรุ่นPhysiol. Behav. 105, 1156–1160. doi: 10.1016/j.physbeh.2011.12.013
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Corda, MG, Lecca, D., Piras, G., Di Chiara, G. และ Giorgi, O. (1997). พารามิเตอร์ทางชีวเคมีของการส่งสัญญาณประสาทโดปามีนและ GABA ในระบบประสาทส่วนกลางของหนูโรมันที่มีการหลีกเลี่ยงสูงและหนูโรมันที่มีการหลีกเลี่ยงต่ำBehav. Genet. 27, 527–536. doi: 10.1023/A:1021452814574
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Corda, MG, Piras, G., Piludu, MA และ Giorgi, O. (2014). ผลกระทบที่แตกต่างกันของการบริโภคเอทานอลโดยสมัครใจต่อการหลั่งโดปามีนในนิวเคลียสแอคคัมเบนส์เชลล์ของหนูโรมันที่มีการหลีกเลี่ยงสูงและต่ำ: การศึกษาพฤติกรรมและการวิเคราะห์ไมโครไดอะไลซิสในสมองWorld J. Neurosci. 4, 279–292. doi: 10.4236/wjns.2014.43031
Dahlstrom, A. และ Fuxe, K. (1964). หลักฐานการมีอยู่ของเซลล์ประสาทที่มีโมโนอะมีนในระบบประสาทส่วนกลาง I. การสาธิตโมโนอะมีนในตัวเซลล์ของเซลล์ประสาทก้านสมองActa Physiol. Scand. Suppl. 62, 1–54.
Damsma, G., Pfaus, J., Wenkstern, D., Phillips, A., และ Fibiger, H. (1992). พฤติกรรมทางเพศเพิ่มการส่งสัญญาณโดปามีนในนิวเคลียสแอคคัมเบนส์และสไตรอาตัมของหนูตัวผู้: การเปรียบเทียบกับความแปลกใหม่และการเคลื่อนไหวBehav. Neurosci. 106, 181–191. doi: 10.1037/0735-7044.106.1.181
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
D'Angio, M., Serrano, A., Driscoll, P., และ Scatton, B. (1988). การกระตุ้นจากสิ่งแวดล้อมที่ก่อให้เกิดความเครียดเพิ่มระดับ DOPAC นอกเซลล์ในคอร์เทกซ์ส่วนหน้าของหนูที่มีอารมณ์ต่ำ (Roman high-avoidance) แต่ไม่เพิ่มในหนูที่มีอารมณ์สูง (Roman low-avoidance) การศึกษาทางโวลแทมเมตริกในร่างกายBrain Res. 451, 237–247. doi: 10.1016/0006-8993(88)90768-8
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Davis, JF, Loos, M., Di Sebastiano, AR, Brown, JL, Lehman, MN และ Coolen, LM (2010). รอยโรคในคอร์เทกซ์พรีฟรอนทัลส่วนกลางทำให้เกิดพฤติกรรมทางเพศที่ไม่เหมาะสมในหนูตัวผู้Biol. Psychiatry 67, 1199–1204. doi: 10.1016/j.biopsych.2009.12.029
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Díaz-Morán, S. , Palència, M. , Mont-Cardona, C. , Cañete, T. , Blázquez, G. , Martínez-Membrives, E. , และคณะ (2012) รูปแบบการรับมือและการตอบสนองของฮอร์โมนความเครียดในหนูที่มีความหลากหลายทางพันธุกรรม: การเปรียบเทียบกับสายพันธุ์หนูโรมันประพฤติตน การทำงานของสมอง 228, 203–210. ดอย: 10.1016/j.bbr.2011.12.002
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Driscoll, P. และ Bättig, K. (1982). “ลักษณะทางพฤติกรรม อารมณ์ และสารเคมีในระบบประสาทของหนูที่ถูกคัดเลือกจากความแตกต่างอย่างมากในประสิทธิภาพการหลีกเลี่ยงแบบสองทาง” ในGenetics of the Brain , บรรณาธิการ I. Lieblich (อัมสเตอร์ดัม: Elsevier), 95–123.
Dunlop, BW และ Nemeroff, CB (2007). บทบาทของโดปามีนในพยาธิสรีรวิทยาของภาวะซึมเศร้าArch. Gen. Psychiatry 64, 327–337. doi: 10.1001/archpsyc.64.3.327
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Escorihuela, RM, Fernández-Teruel, A., Gil, L., Aguilar, R., Tobeña, A., และ Driscoll, P. (1999). หนูสายพันธุ์โรมันที่มีการหลีกเลี่ยงสูงและต่ำ: ความแตกต่างในพฤติกรรมความวิตกกังวล การแสวงหาสิ่งใหม่ และพฤติกรรมในกล่องทดลองPhysiol. Behav. 67, 19–26. doi: 10.1016/S0031-9384(99)00064-5
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Everitt, BJ (1990). แรงจูงใจทางเพศ: การวิเคราะห์ทางประสาทและพฤติกรรมของกลไกที่อยู่เบื้องหลังการตอบสนองต่อการอยากอาหารและการผสมพันธุ์ของหนูตัวผู้Neurosci. Biobehav. Rev. 14, 217–232. doi: 10.1016/s0149-7634(05)80222-2
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Everitt, BJ และ Robbins, TW (2005). ระบบประสาทของการเสริมแรงสำหรับการเสพติดยา: จากการกระทำสู่พฤติกรรมสู่การบังคับNat. Neurosci. 8, 1481–1489. doi: 10.1038/nn1579
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Fadda, F., Argiolas, A., Melis, MR, Tissari, AH, Onali, PL และ Gessa, GL (1978). การเพิ่มขึ้นของระดับ 3,4-dihydroxyphenylacetic acid (DOPAC) ในเปลือกสมองและนิวเคลียสแอคคัมเบนส์ที่เกิดจากความเครียด: การกลับคืนสู่สภาพเดิมโดยไดอะซีแพมLife Sci. 23, 2219–2224. doi: 10.1016/b978-0-08-023768-8.51934-4
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Fattore, L., Piras, G., Corda, MG, และ Giorgi, O. (2009). หนูสายพันธุ์โรมันที่มีการหลีกเลี่ยงสูงและต่ำแตกต่างกันในการเรียนรู้ การคงอยู่ การดับ และการกลับมาเสพโคเคนทางหลอดเลือดดำซ้ำNeuropsychopharmacology 34, 1091–1101. doi: 10.1038/npp.2008.43
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Febo, M. (2011). การทำงานของเซลล์ในสมองส่วนหน้าของหนูตัวผู้ขณะเข้าใกล้หนูตัวเมียที่พร้อมผสมพันธุ์: ปฏิสัมพันธ์กับโคเคนSynapse 65, 271–277. doi: 10.1002/syn.20843
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Fernández-Guasti, A., Omaña-Zapata, I., Luján, M., และ Condés-Lara, M. (1994). ผลของการผ่าตัดรัดเส้นประสาทไซแอติกต่อพฤติกรรมทางเพศของหนูตัวผู้ที่มีประสบการณ์และไม่มีประสบการณ์ทางเพศ: ผลของการตัดเปลือกสมองส่วนหน้าPhysiol. Behav. 55, 577–581. doi: 10.1016/0031-9384(94)90119-8
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Fernández-Teruel, A., Driscoll, P., Gil, L., Aguilar, R., Tobeña, A., และ Escorihuela, RM (2002). ผลกระทบที่ยั่งยืนของการเสริมสร้างสภาพแวดล้อมต่อการแสวงหาสิ่งใหม่ การบริโภคแซคคารินและเอทานอลในหนูทดลองสองสายพันธุ์ (RHA/Verh และ RLA/Verh) ที่แตกต่างกันในพฤติกรรมการแสวงหาสิ่งจูงใจPharmacol. Biochem. Behav. 73, 225–231. doi: 10.1016/s0091-3057(02)00784-0
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Giménez-Llort, L., Cañete, T., Guitart-Masip, M., Fernández-Teruel, A. และ Tobeña, A. (2005) ฟี โนไทป์ที่เกิดจากอะโปมอร์ฟีนที่โดดเด่นสองชนิดในหนูที่มีการหลีกเลี่ยงสูงและต่ำของโรมันประพฤติตน 86, 458–466. ดอย: 10.1016/j.physbeh.2005.07.021
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Giorgi, O., Lecca, D., Piras, G., และ Corda, MG (2005). การกระตุ้นการปลดปล่อยโดปามีนที่แตกต่างกันในแกนกลางและเปลือกของนิวเคลียสแอคคัมเบนส์หลังจากการฉีดแอมเฟตามีนแบบเฉียบพลันหรือแบบซ้ำๆ: การศึกษาเปรียบเทียบในหนูสายพันธุ์โรมันที่มีการหลีกเลี่ยงสูงและต่ำNeuroscience 135, 987–998. doi: 10.1016/j.neuroscience.2005.06.075
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Giorgi, O., Lecca, D., Piras, G., Driscoll, P., และ Corda, MG (2003a). การแยกความแตกต่างระหว่างการปลดปล่อยโดปามีนในเมโซคอร์ติคัลและพฤติกรรมที่เกี่ยวข้องกับความกลัวในหนูทดลองสองสายพันธุ์ที่ได้รับการคัดเลือกทางจิตวิทยาซึ่งมีความแตกต่างกันในกลยุทธ์การรับมือกับสภาวะที่ไม่พึงประสงค์Eur. J. Neurosci. 17, 2716–2726. doi: 10.1046/j.1460-9568.2003.02689.x
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Giorgi, O., Piras, G., Lecca, D., Hansson, S., Driscoll, P., และ Corda, MG (2003b). คุณสมบัติทางเคมีประสาทที่แตกต่างกันของการส่งสัญญาณเซโรโทนินในส่วนกลางในหนูโรมันที่มีการหลีกเลี่ยงสูงและต่ำJ. Neurochem. 86, 422–431. doi: 10.1046/j.1471-4159.2003.01845.x
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Giorgi, O., Orlandi, M., Escorihuela, RM, Driscoll, P., Lecca, D., และ Corda, MG (1994). การส่งสัญญาณ GABAergic และ dopaminergic ในสมองของหนู Roman ที่มีการหลีกเลี่ยงสูงและหนู Roman ที่มีการหลีกเลี่ยงต่ำBrain Res. 638, 133–138. doi: 10.1016/0006-8993(94)90642-4
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Giorgi, O., Piras, G., และ Corda, MG (2007). สายพันธุ์หนูโรมันที่คัดเลือกทางจิตวิทยาที่มีระดับการหลีกเลี่ยงสูงและต่ำ: แบบจำลองเพื่อศึกษาความเปราะบางของแต่ละบุคคลต่อการติดยาเสพติดNeurosci. Biobehav. Rev. 31, 148–163. doi: 10.1016/j.neubiorev.2006.07.008
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Goto, Y. และ Grace, AA (2005). การปรับเปลี่ยนการทำงานของโดปามีนในระบบลิมบิกและคอร์เทกซ์ของนิวเคลียสแอคคัมเบนส์ในพฤติกรรมที่มุ่งเป้าหมายNat. Neurosci. 8, 805–812. doi: 10.1038/nn1471
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Gresch, PJ, Sved, AF, Zigmond, MJ และ Finlay, JM (1995). อิทธิพลเฉพาะที่ของนอร์เอพิเนฟรินภายในร่างกายต่อโดปามีนนอกเซลล์ในคอร์เทกซ์ส่วนหน้าด้านในของหนู. J. Neurochem. 65, 111–116. doi: 10.1046/j.1471-4159.1995.65010111.x
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Hernández-Gonzáles, M., Guevara, MA, Cervantes, M., Morali, G. และ Corsi-Cabrera, M. (1998). แถบความถี่ลักษณะเฉพาะของคลื่นไฟฟ้าสมองส่วนคอร์เทกซ์และฟรอนทัลระหว่างการมีปฏิสัมพันธ์ทางเพศของหนูตัวผู้ อันเป็นผลมาจากการวิเคราะห์ปัจจัยJ. Physiology 92, 43–50. doi: 10.1016/s0928-4257(98)80022-3
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Hernández-Gonzáles, M., Prieto-Beracoechea, CA, Arteaga-Silva, M. และ Guevara, MA (2007). การทำงานที่แตกต่างกันของคอร์เทกซ์พรีฟรอนทัลส่วนกลางและส่วนวงโคจรในระหว่างภารกิจที่กระตุ้นทางเพศในหนู. Physiol. Behav. 90, 450–458. doi: 10.1016/j.physbeh.2006.10.006
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Horn, AS (1973). ความสัมพันธ์ระหว่างโครงสร้างและฤทธิ์ในการยับยั้งการดูดซึมแคเทโคลามีนเข้าสู่ไซแนปโทโซมจากเซลล์ประสาทนอร์อะดรีเนอร์จิกและโดปามิเนอร์จิกในสารละลายสมองหนูBr. J. Pharmacol. 47, 332–338. doi: 10.1111/j.1476-5381.1973.tb08331.x
Hull, EM, Du, J., Lorrain, DS, และ Matuszewich, L. (1995). โดปามีนนอกเซลล์ในบริเวณพรีออปติกส่วนกลาง: นัยสำคัญต่อแรงจูงใจทางเพศและการควบคุมฮอร์โมนของการร่วมเพศJ. Neurosci. 15, 7465–7471.
Hull, EM, Lorrain, DS, Du, J., Matuszewich, L., Lumley, LA, Putnam, SK และคณะ (1999). ปฏิสัมพันธ์ระหว่างฮอร์โมนและสารสื่อประสาทในการควบคุมพฤติกรรมทางเพศBehav. Brain Res. 105, 105–116. doi: 10.1016/s0166-4328(99)00086-8
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Hull, EM, Weber, MS, Eaton, RC, Dua, R., Markowski, VP, Lumley, L. และคณะ (1991). ตัวรับโดปามีนในบริเวณเท็กเมนทัลส่วนล่างมีผลต่อองค์ประกอบการเคลื่อนไหว แต่ไม่มีผลต่อองค์ประกอบแรงจูงใจหรือปฏิกิริยาตอบสนองของการผสมพันธุ์ในหนูตัวผู้Brain Res. 554, 72–76. doi: 10.1016/0006-8993(91)90173-S
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Ikemoto, S. และ Panksepp, J. (1999). บทบาทของโดปามีนในนิวเคลียสแอคคัมเบนส์ในพฤติกรรมที่เกิดจากแรงจูงใจ: การตีความแบบรวมเป็นหนึ่งเดียวโดยเฉพาะอย่างยิ่งเกี่ยวกับการแสวงหารางวัลBrain Res. Rev. 31, 6–41. doi: 10.1016/S0165-0173(99)00023-5
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Kakeyama, M., Sone, H., Miyabara, Y. และ Tohyama, C. (2003). การสัมผัส 2,3,7,8-tetrachlorodibenzo-p-dioxin ในช่วงปริกำเนิด เปลี่ยนแปลงการแสดงออกของ BDNF mRNA ที่ขึ้นอยู่กับกิจกรรมในเปลือกสมองส่วนหน้า และพฤติกรรมทางเพศของหนูตัวผู้ในวัยผู้ใหญ่Neurotoxicology 24, 207–217. doi: 10.1016/S0161-813x(02)00214-0
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Lecca, D., Piras, G., Driscoll, P., Giorgi, O., และ Corda, MG (2004). การกระตุ้นที่แตกต่างกันของสารโดปามีนในส่วนเปลือกและแกนกลางของนิวเคลียสแอคคัมเบนส์มีความสัมพันธ์กับการตอบสนองทางมอเตอร์ต่อยาเสพติด: การศึกษาการฟอกไตในสมองของหนูโรมันที่มีการหลีกเลี่ยงสูงและต่ำNeuropharmacology 46, 688–699. doi: 10.1016/j.neuropharm.2003.11.011
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Manzo, L. , Gómez, MJ, Callejas-Aguilera, JE, Donaire, R. , Sabariego, M. , Fernández-Teruel, A. , และคณะ (2014ก) ความสัมพันธ์ระหว่างความชอบเอทานอลกับการแสวงหาความรู้สึก/ความแปลกใหม่ฟิสิออล. ประพฤติตน 133, 53–60. ดอย: 10.1016/j.physbeh.2014.05.003
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Manzo, L., Gómez, MJ, Callejas-Aguilera, JE, Fernández-Teruel, A., Papini, MR, และ Torres, C. (2014b) การใช้ยาต้านความวิตกกังวลด้วยตนเองที่เกิดจากการสูญเสียแรงจูงใจในหนูฟิสิออล. ประพฤติตน 123, 86–92. ดอย: 10.1016/j.physbeh.2013.10.002
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Masana, M., Bortolozzi, A. และ Artigas, F. (2011). การเพิ่มประสิทธิภาพการส่งสัญญาณโดปามีนในสมองส่วนกลางอย่างเลือกสรรโดยยาที่ออกฤทธิ์ต่อระบบนอร์อะดรีนาลิน: โอกาสในการรักษาโรคจิตเภทInt. J. Neuropsychopharmacol. 14, 53–68. doi: 10.1017/s1461145710000908
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Meisel, RL และ Sachs, BD (1994). “สรีรวิทยาของพฤติกรรมทางเพศของเพศชาย” ในสรีรวิทยาของการสืบพันธุ์เล่ม 2 ฉบับที่ 2 บรรณาธิการ E. Knobil และ J. Neil (นิวยอร์ก, NY: Raven Press), 3–96.
Melis, MR และ Argiolas, A. (1995). โดปามีนและพฤติกรรมทางเพศNeurosci. Biobehav. Rev. 19, 19–38. doi: 10.1016/0149-7634(94)00020-2
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Melis, MR และ Argiolas, A. (2011). การควบคุมส่วนกลางของการแข็งตัวของอวัยวะเพศชาย: การทบทวนบทบาทของออกซิโทซินและการมีปฏิสัมพันธ์กับโดปามีนและกรดกลูตามิกในหนูตัวผู้Neurosci. Biobehav. Rev. 35, 939–955. doi: 10.1016/j.neubiorev.2010.10.014
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Melis, MR, Melis, T., Cocco, C., Succu, S., Sanna, F., Pillolla, G., et al. (2007). การฉีดออกซิโทซินเข้าไปในบริเวณเวนทรัลเทกเมนทัลทำให้เกิดการแข็งตัวของอวัยวะเพศและเพิ่มโดปามีนนอกเซลล์ในนิวเคลียสแอคคัมเบนส์และนิวเคลียสพาราเวนทริคูลาร์ของไฮโปทาลามัสในหนูตัวผู้Eur. J. Neurosci. 26, 1026–1035. doi: 10.1111/j.1460-9568.2007.05721.x
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Melis, MR, Succu, S., Cocco, C., Caboni, E., Sanna, F., Boi, A., และคณะ (2010). ออกซิโทซินกระตุ้นการแข็งตัวของอวัยวะเพศชายเมื่อฉีดเข้าไปในซับบิคูลัมส่วนท้อง: บทบาทของไนตริกออกไซด์และกรดกลูตามิกNeuropharmacology 58, 1153–1160. doi: 10.1016/j.neuropharm.2010.02.008
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Melis, MR, Succu, S., Mascia, MS, Cortis, L. และ Argiolas, A. (2003). การเพิ่มขึ้นของโดปามีนนอกเซลล์ในนิวเคลียสพาราเวนทริคูลาร์ของหนูตัวผู้ระหว่างกิจกรรมทางเพศEur. J. Neurosci. 17, 1266–1272. doi: 10.1046/j.1460-9568.2003.02558.x
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Melis, MR, Succu, S., Sanna, F., Boi, A., และ Argiolas, A. (2009). การฉีดออกซิโทซินเข้าไปในซับบิคูลัมส่วนล่างหรือนิวเคลียสคอร์ติคัลส่วนหลังด้านในของอะมิกดาลา ทำให้เกิดการแข็งตัวของอวัยวะเพศและเพิ่มระดับโดปามีนนอกเซลล์ในนิวเคลียสแอคคัมเบนส์ของหนูตัวผู้Eur. J. Neurosci. 30, 1349–1357. doi: 10.1111/j.1460-9568.2009.06912.x
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Moreno, M., Cardona, D., Gómez, MJ, Sánchez-Santed, F., Tobeña, A., Fernández-Teruel, A., และคณะ (2010). การจำแนกลักษณะความหุนหันพลันแล่นในหนูสายพันธุ์โรมันที่มีการหลีกเลี่ยงสูงและต่ำ: ความแตกต่างทางพฤติกรรมและสารเคมีในระบบประสาทNeuropsychopharmacology 35, 1198–1208. doi: 10.1038/npp.2009.224
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Oliveras, I., Río-Álamos, C., Cañete, T., Blázquez, G., Martínez-Membrives, E., Giorgi, O., และคณะ (2015). การยับยั้งการตอบสนองต่อสิ่งเร้าก่อนหน้าสามารถทำนายประสิทธิภาพของหน่วยความจำใช้งานเชิงพื้นที่ในหนูสายพันธุ์โรมันที่มีการหลีกเลี่ยงสูงและต่ำ และในหนู NIH-HS ที่มีความหลากหลายทางพันธุกรรม: ความเกี่ยวข้องกับการศึกษาความผิดปกติของการรับรู้ก่อนการใส่ใจและทางด้านความรู้ความเข้าใจในโรคจิตเภทFront. Behav. Neurosci. 9:213. doi: 10.3389/fnbeh.2015.00213
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Paxinos, G. และ Watson, C. (2004). สมองหนูในพิกัดสเตอริโอแท็กซิกฉบับที่ 4 นิวยอร์ก: Academic Press.
Pfaus, JG (2010). โดปามีน: ช่วยให้เพศชายผสมพันธุ์มาอย่างน้อย 200 ล้านปี: ความคิดเห็นเชิงทฤษฎีเกี่ยวกับ Kleitz-Nelson et al. (2010). Behav. Neurosci. 124, 877–880. doi: 10.1037/a0021823
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Pfaus, JG, Damsma, G., Nomikos, GG, Wenkstern, DG, Blaha, CD, Phillips, AG และคณะ (1990). พฤติกรรมทางเพศช่วยเพิ่มการส่งสัญญาณโดปามีนในสมองส่วนกลางของหนูตัวผู้Brain Res. 530, 345–348. doi: 10.1016/0006-8993(90)91309-5
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Pfaus, JG และ Everitt, BJ (1995). “จิตเภสัชวิทยาของพฤติกรรมทางเพศ” ในPsychopharmacology: The Fourth Generation of Progressบรรณาธิการ FE Bloom และ DJ Kupfer (นิวยอร์ก, NY: Raven Press), 742–758.
Pfaus, JG และ Phillips, AG (1991). บทบาทของโดปามีนในแง่มุมการคาดการณ์และการบรรลุผลของพฤติกรรมทางเพศในหนูตัวผู้Behav. Neurosci. 105, 727–747. doi: 10.1037/0735-7044.105.5.727
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Piras, G., Giorgi, O., และ Corda, MG (2010). ผลของยาต้านซึมเศร้าต่อประสิทธิภาพในการทดสอบการว่ายน้ำแบบบังคับของหนูทดลองสองสายพันธุ์ที่ได้รับการคัดเลือกทางพันธุกรรมทางจิตเวชซึ่งมีความแตกต่างกันในกลยุทธ์การรับมือกับสภาวะที่ไม่พึงประสงค์Psychopharmacology 211, 403–414. doi: 10.1007/s00213-010-1904-x
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Piras, G., Piludu, MA, Giorgi, O., และ Corda, MG (2014). ผลของการรักษาด้วยยาต้านซึมเศร้าเรื้อรังในแบบจำลองทางพันธุกรรมที่สันนิษฐานว่ามีความเปราะบาง (หนูโรมันที่มีการหลีกเลี่ยงต่ำ) และมีความต้านทาน (หนูโรมันที่มีการหลีกเลี่ยงสูง) ต่อภาวะซึมเศร้าที่เกิดจากความเครียดPsychopharmacology 231, 43–53. doi: 10.1007/s00213-013-3205-7
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Pitchers, KK, Frohmader, KS, Vialou, V., Mouzon, K., Nestler, EJ, Lehman, MN และคณะ (2010). ΔFosB ในนิวเคลียสแอคคัมเบนส์มีความสำคัญต่อผลเสริมแรงของรางวัลทางเพศGenes Brain Behav. 9, 831–840. doi: 10.1111/j.1601-183X.2010.00621.x
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Pitchers, KK, Coppens, CM, Beloate, LN, Fuller, J., Van, S., Frohmader, KS และคณะ (2014). การเปลี่ยนแปลงทางประสาทของเซลล์ประสาทโดปามีนในบริเวณเท็กเมนทัลส่วนล่างที่เกิดจากโอปิออยด์ภายในร่างกาย มีอิทธิพลต่อรางวัลตามธรรมชาติและรางวัลจากโอปิออยด์J. Neurosci. 34, 8825–8836. doi: 10.1523/JNEUROSCI.0133-14.2014
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Pitchers, KK, Vialou, V., Nestler, EJ, Laviolette, SR, Lehman, MN และ Coolen, LM (2013). รางวัลจากธรรมชาติและยาเสพติดมีผลต่อกลไกความยืดหยุ่นของระบบประสาททั่วไป โดยมี ΔFosB เป็นตัวกลางสำคัญวารสารประสาทวิทยาศาสตร์ 33, 3434–3442. doi: 10.1523/JNEUROSCI.4881-12.2013
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Pleim, E., Matochik, J., Barfield, R., และ Auerbach, S. (1990). ความสัมพันธ์ของการปลดปล่อยโดปามีนในนิวเคลียสแอคคัมเบนส์กับพฤติกรรมทางเพศแบบเพศชายในหนูBrain Res. 524, 160–163. doi: 10.1016/0006-8993(90)90507-8
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Robbins, TW และ Arnsten, AFT (2009). เภสัชวิทยาประสาทของหน้าที่บริหารจัดการส่วนหน้า: การปรับเปลี่ยนโมโนอะมิเนอร์จิกAnn. Rev. Neurosci. 32, 267–287. doi: 10.1146/annurev.neuro.051508.135535
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Sabariego, M., Morón, I., Gómez, MJ, Donaire, R., Tobeña, A., Fernández-Teruel, A., และคณะ (2013). การสูญเสียแรงจูงใจและการแสดงออกของยีนในฮิปโปแคมปัสในหนูทดลองสายพันธุ์โรมันที่มีการหลีกเลี่ยงสูง (RHA-I) และสายพันธุ์โรมันที่มีการหลีกเลี่ยงต่ำ (RLA-I) Behav. Brain Res. 257, 62–70. doi: 10.1016/j.bbr.2013.09.025
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Sachs, BD (2000). แนวทางเชิงบริบทต่อสรีรวิทยาและการจำแนกประเภทของการทำงานของอวัยวะเพศชาย ภาวะหย่อนสมรรถภาพทางเพศ และการกระตุ้นทางเพศNeurosci. Biobehav. Rev. 24, 541–560. doi: 10.1016/S0149-7634(00)00022-1
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Sachs, BD, Akasofu, K., Citro, JK, Daniels, SB และ Natoli, JH (1994). การกระตุ้นแบบไม่สัมผัสจากตัวเมียที่เป็นสัดทำให้เกิดการแข็งตัวของอวัยวะเพศในหนูPhysiol. Behav. 55, 1073–1079. doi: 10.1016/0031-9384(94)90390-5
Sachs, BD และ Barfield, RJ (1976). การวิเคราะห์เชิงหน้าที่ของพฤติกรรมการผสมพันธุ์เพศผู้ในหนูAdv. Stud. Behav. 7, 91–154. doi: 10.1016/s0065-3454(08)60166-7
Salamone, JD, Pardo, M., Yohn, SE, López-Cruz, L., San Miguel, N. และ Correa, M. (2016). โดปามีนในระบบเมโซลิมบิกและการควบคุมพฤติกรรมที่เกิดจากแรงจูงใจCurr. Top. Behav. Neurosci. 27, 231–257. doi: 10.1007/7854_2015_383
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Sanna, F., Corda, MG, Melis, MR, Piludu, MA, Giorgi, O., และ Argiolas, A. (2014a). หนูเพศผู้สายพันธุ์ Roman ที่หลีกเลี่ยงสูงและต่ำแสดงรูปแบบพฤติกรรมการผสมพันธุ์ที่แตกต่างกัน: การเปรียบเทียบกับหนูสายพันธุ์ Sprague Dawley Physiol. Behav. 127, 27–36. doi: 10.1016/j.physbeh.2014.01.002
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Sanna, F., Piludu, MA, Corda, MG, Argiolas, A., Giorgi, O., และ Melis, MR (2014b). โดปามีนมีส่วนเกี่ยวข้องกับรูปแบบพฤติกรรมการผสมพันธุ์ที่แตกต่างกันของหนูโรมันที่มีการหลีกเลี่ยงสูงและต่ำ: การศึกษาด้วยอะโพมอร์ฟีนและฮาโลเพอริดอลPharmacol. Biochem. Behav. 124, 211–219. doi: 10.1016/j.pbb.2014.06.012
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Sanna, F., Piludu, MA, Corda, MG, Melis, MR, Giorgi, O. และ Argiolas, A. (2015). การมีส่วนร่วมของโดปามีนในความแตกต่างของพฤติกรรมทางเพศระหว่างหนูสายพันธุ์ Roman ที่มีการหลีกเลี่ยงสูงและต่ำ: การศึกษาด้วยไมโครไดอะไลซิสในสมองBehav. Brain Res. 281, 177–186. doi: 10.1016/j.bbr.2014.12.009
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Scatton, B., D'Angio, M., Driscoll, P., และ Serrano, A. (1988). การศึกษา ทางโวลแทมเมตริกในร่างกายของการตอบสนองของเซลล์ประสาทโดปามีนในเมโซคอร์ติคัลและเมโซแอคคัมเบนส์ต่อสิ่งเร้าจากสิ่งแวดล้อมในหนูสายพันธุ์ต่างๆ ที่มีระดับอารมณ์แตกต่างกันAnn. NY Acad. Sci. 537, 124–137. doi: 10.1111/j.1749-6632.1988.tb42101.x
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Steimer, T. และ Driscoll, P. (2003). การตอบสนองต่อความเครียดและรูปแบบการรับมือที่แตกต่างกันในหนูสายพันธุ์ Roman ที่ได้รับการคัดเลือกทางพันธุกรรมที่มีระดับการหลีกเลี่ยงสูง (RHA) และต่ำ (RLA): ด้านพฤติกรรม ระบบประสาทต่อมไร้ท่อ และพัฒนาการStress 6, 87–100. doi: 10.1080/1025389031000111320
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Succu, S., Sanna, F., Argiolas, A., และ Melis, MR (2011). การฉีดออกซิโทซินเข้าไปในซับคิวลัมส่วนล่างของฮิปโปแคมปัสทำให้เกิดการแข็งตัวของอวัยวะเพศในหนูตัวผู้โดยการเพิ่มการส่งสัญญาณประสาทกลูตาเมอร์จิกในบริเวณเท็กเมนทัลส่วนล่างNeuropharmacology 61, 181–188. doi: 10.1016/j.neuropharm.2011.03.026
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Succu, S., Sanna, F., Cocco, C., Melis, T., Boi, A., Ferri, GL, et al. (2008). ออกซิโทซินกระตุ้นการแข็งตัวของอวัยวะเพศชายเมื่อฉีดเข้าไปในบริเวณเท็กเมนทัลด้านล่างของหนูตัวผู้: บทบาทของไนตริกออกไซด์และไซคลิกจีเอ็มพีEur. J. Neurosci. 28, 813–821. doi: 10.1111/j.1460-9568.2008.06385.x
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Succu, S., Sanna, F., Melis, T., Boi, A., Argiolas, A., และ Melis, MR (2007). การกระตุ้นตัวรับโดปามีนในนิวเคลียสพาราเวนทริคูลาร์ของไฮโปทาลามัสในหนูตัวผู้ทำให้เกิดการแข็งตัวของอวัยวะเพศและเพิ่มโดปามีนนอกเซลล์ในนิวเคลียสแอคคัมเบนส์: การมีส่วนร่วมของออกซิโทซินส่วนกลางNeuropharmacology 52, 1034–1043. doi: 10.1016/j.neuropharm.2006.10.019
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Thierry, AM, Tassin, JP, Blanc, G. และ Glowinski, J. (1976). การกระตุ้นระบบโดปามีนในสมองส่วนกลางอย่างจำเพาะเจาะจงโดยความเครียดNature 263, 242–244. doi: 10.1038/263242a0
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Wenkstern, D., Pfaus, J. และ Fibiger, H. (1993). การส่งสัญญาณโดปามีนเพิ่มขึ้นในนิวเคลียสแอคคัมเบนส์ของหนูตัวผู้ระหว่างการสัมผัสกับหนูตัวเมียที่พร้อมผสมพันธุ์เป็นครั้งแรกBrain Res. 618, 41–46. doi: 10.1016/0006-8993(93)90426-N
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Westernik, BHC, De Boer, P., De Vries, JB และ Long, S. (1998). ยาต้านโรคจิตทำให้เกิดผลคล้ายคลึงกันต่อการปล่อยโดปามีนและนอร์อะดรีนาลีนในคอร์เทกซ์พรีฟรอนทัลส่วนกลางของสมองหนู. Eur. J. Pharmacol. 361, 27–33. doi: 10.1016/s0014-2999(98)00711-0
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
Willig, F., M'Harzi, M., Bardelay, C., Viet, D. และ Delacour, J. (1991). สายพันธุ์โรมันเป็นแบบจำลองทางจิตพันธุกรรมสำหรับการศึกษาความจำใช้งาน: ข้อมูลพฤติกรรมและชีวเคมีPharmacol. Biochem. Behav. 40, 7–16. doi: 10.1016/0091-3057(91)90313-q
Zeier, H., Baettig, K., และ Driscoll, P. (1978). การเรียนรู้พฤติกรรม DRL-20 ในหนูทดลองเพศผู้และเพศเมียสายพันธุ์โรมันที่มีการหลีกเลี่ยงสูงและต่ำPhysiol. Behav. 20, 791–793. doi: 10.1016/0031-9384(78)90307-4
บทคัดย่อจาก PubMed | บทความฉบับเต็มจาก CrossRef | Google Scholar
คำสำคัญ: พฤติกรรมทางเพศ, โดปามีน, noradrenaline, mPFC, microdialysis, RHA และ RLA หนู
การอ้างอิง: Sanna F, Bratzu J, Piludu MA, Corda MG, Melis MR, Giorgi O และ Argiolas A (2017) โดปามีน, Noradrenaline และความแตกต่างในพฤติกรรมทางเพศระหว่างหนูเพศผู้สูงและต่ำที่หลีกเลี่ยงได้: การศึกษา Microdialysis . ด้านหน้า Behav Neurosci 11: 108 doi: 10.3389 / fnbeh.2017.00108
ได้รับ: 22 ธันวาคม 2016; ยอมรับแล้ว: 19 อาจ 2017;
เผยแพร่: 07 มิถุนายน 2017