فرونت. الطب النفسي، ٢٥ فبراير ٢٠١٦ | http://dx.doi.org/10.3389/fpsyt.2016.00024
جاريد جودمان ومارك جي. باكارد *
- قسم علم النفس ، معهد تكساس إيه آند إم لعلم الأعصاب ، جامعة تكساس إيه آند إم ، كوليج ستيشن ، تكساس ، الولايات المتحدة الأمريكية
حظيت فكرة أن أنظمة الذاكرة المتميزة تشريحيًا تُسهم بشكلٍ متفاوت في تطور إدمان المخدرات والانتكاس بدعمٍ واسع. تُعيد هذه المراجعة الموجزة النظر في هذه الفرضية كما طُرحت لأول مرة قبل 20 عامًا ( 1 )، وتُسلط الضوء على العديد من التطورات الحديثة. تُشير أبحاثٌ مُستفيضة، باستخدام نماذج تعلم حيوانية متنوعة، إلى أن أنظمة عصبية قابلة للفصل تُساهم في أنواعٍ مُختلفة من التعلم والذاكرة. يُحتمل أن يُسهم كل نظام ذاكرة بمكونات فريدة في السلوك المُكتسب الذي يدعم إدمان المخدرات والانتكاس. على وجه الخصوص، قد يعكس التحول من تعاطي المخدرات الترفيهي إلى تعاطي المخدرات القهري تحولًا عصبيًا تشريحيًا من التحكم المعرفي في السلوك الذي يتوسطه الحصين/الجسم المخطط الظهري الإنسي إلى التحكم الاعتيادي في السلوك الذي يتوسطه الجسم المخطط الظهري الوحشي. بالإضافة إلى ذلك، قد يُشكل التوتر/القلق عاملًا مُساعدًا يُسهل الذاكرة المُعتمدة على الجسم المخطط الظهري الوحشي، وقد يكون هذا بمثابة آلية عصبية سلوكية تُفسر زيادة تعاطي المخدرات والانتكاس لدى البشر بعد أحداث الحياة الضاغطة. تستند الأدلة الداعمة لنظرية الأنظمة المتعددة لإدمان المخدرات بشكل أساسي إلى دراسات التعلم والذاكرة التي استخدمت كمعززات موادًا إدمانية تُعتبر عادةً من ضمن أبحاث إدمان المخدرات، بما في ذلك الكوكايين والكحول والأمفيتامينات. إضافةً إلى ذلك، تشير أدلة حديثة إلى أن منهج أنظمة الذاكرة قد يكون مفيدًا أيضًا في فهم مصادر الإدمان الحالية التي تعكس المخاوف الصحية الناشئة، بما في ذلك تعاطي الماريجوانا، واتباع نظام غذائي غني بالدهون، ولعب ألعاب الفيديو.
المقدمة
كثيرًا ما يلجأ الباحثون إلى آليات التعلم والسلوك لتفسير كيفية اكتساب الأمراض النفسية البشرية وظهورها. وقدّم نورمان إم. وايت مثالًا على هذا التطبيق، إذ وظّف مبادئ نظرية التعلم الكلاسيكية والأدلة التجريبية التي تدعم وجود أنظمة ذاكرة متعددة في الدماغ، ليُقدّم بذلك منهجًا جديدًا ومؤثرًا لدراسة إدمان المخدرات ( 1 ). وعلى وجه التحديد، أشار وايت إلى أن المخدرات قد تؤدي دور "المعززات" التي، مثل الطعام أو الماء في مهمة التعلم، تُقوّي الروابط بين المحفزات المتعلقة بالمخدرات والسياق والسلوك، مما يُشجع على تعاطي المخدرات، ومع مرور الوقت، الإدمان. كما أضاف وايت الفرضية الناشئة القائلة بوجود أنواع مختلفة من الذاكرة تتوسطها أنظمة عصبية منفصلة. ووفقًا لهذا المنظور الجديد، يُمكن للمخدرات أن تُعدّل مباشرةً أنظمة عصبية متعددة، وتقوم هذه الأنظمة العصبية بدورها بتشفير مكونات متميزة من الذاكرة المتعلقة بالمخدرات، والتي عند ظهورها، تُشجع على المزيد من تعاطي المخدرات.
يصادف العام 2016 الذكرى السنوية 20th لنظم أنظمة الذاكرة المتعددة لإدمان المخدرات كما وصفها White. يقوم هذا الاستعراض بإعادة النظر في هذه الفرضية المؤثرة ، مع تسليط الضوء على بعض التطورات الحديثة المهمة التي لم تثبت فقط الفرضية الأصلية فحسب ، بل أسفرت أيضًا عن رؤى إضافية حول كيفية دعم أنظمة الذاكرة المتعددة لإدمان المخدرات.
عرض أنظمة الذاكرة المتعددة للإدمان
تشير الأدلة المتضافرة من الدراسات التي أُجريت على البشر والحيوانات الدنيا إلى أن ذاكرة الثدييات تتوسطها أنظمة عصبية مستقلة نسبيًا [للاطلاع على مراجعات، انظر المراجع ( 2-4 ) ]. أُجريت التجارب المبكرة التي فصلت بين أنظمة الذاكرة المتعددة بشكل أساسي في المتاهة الشعاعية ، وأشارت إلى وظائف ذاكرية فريدة للحصين، والجسم المخطط الظهري، واللوزة الدماغية ( 5 ، 6 ). يتوسط الحصين شكلاً معرفيًا/مكانيًا من الذاكرة، بينما يتوسط الجسم المخطط الظهري ذاكرة العادة القائمة على الاستجابة للمثير. أما اللوزة الدماغية فتتوسط العلاقات البافلوفية والعلاقات الترابطية بين المثير والعاطفة ( 6 ، 7 ) ، بالإضافة إلى دورها في تعديل أنواع أخرى من الذاكرة بفعل الإثارة العاطفية ( 8-12 ).
في سياق نظرية الأنظمة المتعددة للذاكرة، اقترح وايت ( 1 ) أن الحصين والجسم المخطط الظهري واللوزة الدماغية تُشفّر مكونات فريدة من الذكريات المرتبطة بالمخدرات (انظر الشكل 1 ). يُشفّر الحصين المعرفة الصريحة المتعلقة بالعلاقة بين المؤشرات والأحداث (أي ارتباطات المثيرات) في سياق المخدرات. ومن المهم ذكره أن الحصين لا يُشفّر الاستجابات السلوكية، بل إن المعلومات التي يكتسبها تُستخدم لتوليد الاستجابات السلوكية المناسبة للحصول على تعزيز المخدر. من جهة أخرى، يُشفّر الجسم المخطط الظهري الارتباطات بين المثيرات المرتبطة بالمخدرات والاستجابات السلوكية. وهذا قد يسمح بعرض مؤشر مرتبط بالمخدرات لتنشيط استجابة سلوكية تلقائية تؤدي إلى تعاطي المخدر (مثل الاقتراب جريًا أو الضغط على رافعة آلية). أما اللوزة الدماغية فتُشفّر العلاقات الترابطية البافلوفية، مما يسمح بربط المؤشرات المحايدة في سياق المخدرات بمكافأة المخدر. تتفاعل الحيوانات لاحقًا مع هذه الإشارات المشروطة بطريقة مشابهة لتفاعلها الأصلي مع الدواء. تحديدًا، تُفعّل الإشارات المشروطة استجابات عاطفية مشروطة، بما في ذلك الحالات العاطفية الداخلية والاقتراب المشروط من الإشارة المشروطة (أو في بعض الحالات تجنبها). ومن العناصر الأساسية الأخرى لفرضية وايت أن الأدوية قادرة على تعديل وظيفة الذاكرة في كل منطقة من مناطق الدماغ هذه. وبالتالي، يُمكن للأدوية أن تُعزز تعاطيها الذاتي من خلال زيادة ترسيخ الذكريات المتعلقة بالدواء والمُخزنة في الحصين واللوزة الدماغية والجسم المخطط الظهري (انظر الشكل 1 ).
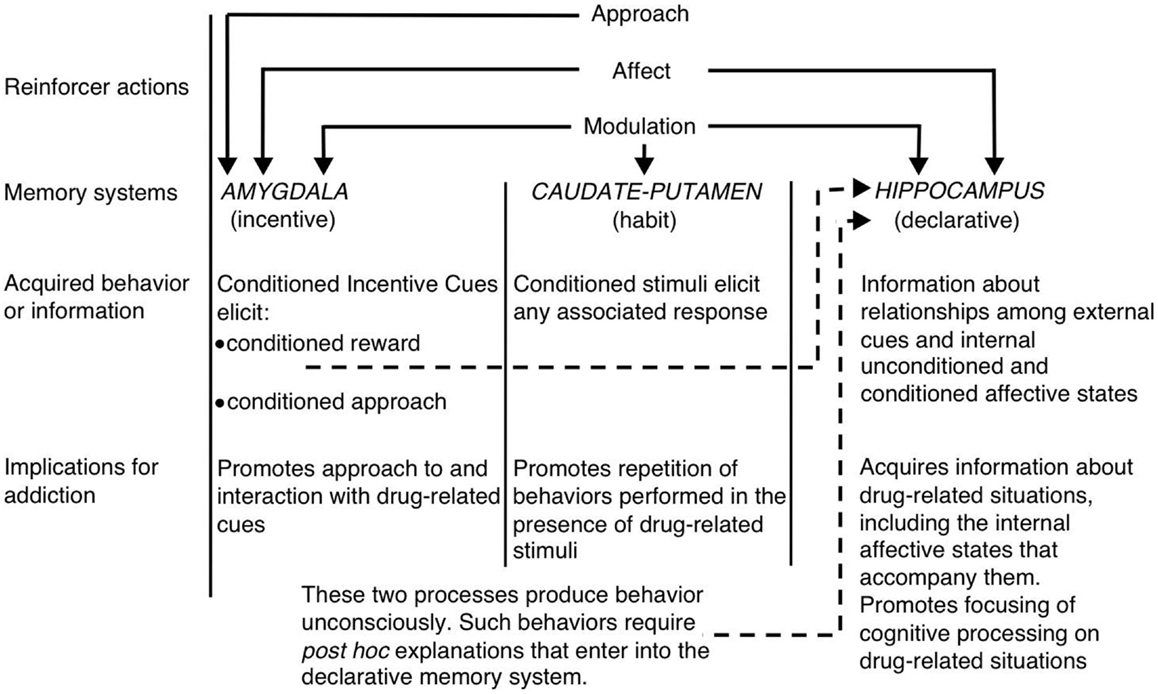
الشكل 1. رؤية وايت ( 1 ) لأنظمة الذاكرة المتعددة في إدمان المخدرات . على غرار المعززات الطبيعية، تمتلك المخدرات الإدمانية عدة "آليات تعزيزية"، بما في ذلك القدرة على استحضار مشاعر إيجابية/سلبية، والاقتراب، وتعديل أنظمة الذاكرة. تتوسط اللوزة الدماغية، والنواة المذنبة-البطامة (أي الجسم المخطط الظهري)، والحصين أنظمة ذاكرة منفصلة، ومن المفترض أن كل نظام ذاكرة يشفر مكونات فريدة من الذكريات المتعلقة بالمخدرات. ونظرًا لخصائصها المعدلة للذاكرة، يمكن للمخدرات الإدمانية أن تعزز تعاطيها الذاتي من خلال تحسين وظيفة هذه الأنظمة. (مقتبس من وايت بإذن من جون وايلي وأولاده).
تماشياً مع نظرية أنظمة الذاكرة المتعددة في إدمان المخدرات، تشير أدلة واسعة النطاق إلى أدوار حاسمة للحصين، والجسم المخطط الظهري، واللوزة الدماغية في إدمان المخدرات والانتكاس لمجموعة متنوعة من المواد المخدرة [للاطلاع على مراجعة، انظر المرجع ( 13 ) ]. ويبدو أن للحصين الظهري دوراً في التحكم السياقي في البحث عن الكوكايين ( 14-16 ). وتتوسط المنطقة الجانبية من الجسم المخطط الظهري ( DLS ) الضغط الاعتيادي على الرافعة (S-R) للكوكايين والكحول ( 17 ، 18 )، وتتوسط اللوزة الدماغية القاعدية الجانبية (BLA) البحث المشروط عن الكوكايين والكحول والهيروين ( 19-22 ). كما يتوافق ذلك مع فرضية وايت، حيث يمكن للمواد المخدرة أن تعدل وظائف الذاكرة في الحصين، والجسم المخطط الظهري، واللوزة الدماغية ( 23-31 ).
ساهمت الدراسات الحديثة في إدخال تعديلات جديدة على نهج أنظمة الذاكرة المتعددة لإدمان المخدرات. تتضمن الميزات الأساسية لهذا العرض المعاصر (1) تحولًا عصبيًا مع مرور الوقت إلى ذاكرة العادة المعتمدة على DLS ، (2) التفاعلات التنافسية بين أنظمة الذاكرة ، (3) دور الإجهاد والقلق في تعزيز البحث المعتاد عن العقاقير ، و (4) تطبيق هذه الفرضية على مصادر جديدة ناشئة من الإدمان.
التحول العصبي من الإدراك إلى العادة
في تجارب التعلم، عادةً ما يستخدم الأفراد سلوكًا هادفًا عند حل مهمة ما في البداية. مع ذلك، بعد تدريب مكثف، يصبح السلوك تلقائيًا ويمكن القيام به دون انتباه أو نية أو جهد معرفي يُذكر، مُشكلاً "عادة" [للمراجعة، انظر المرجع ( 32 )]. في التجارب المبكرة التي أظهرت هذا التحول من التحكم المعرفي في السلوك إلى العادة، تم تدريب القوارض باستخدام مكافأة الطعام في مهمة متاهة زائدية ذات حل مزدوج (33-35 ) . في هذه المهمة، تم إطلاق الفئران من نفس نقطة البداية (مثلًا، الذراع الجنوبي) وكان عليها القيام بدوران ثابت للجسم عند تقاطع المتاهة للحصول على مكافأة الطعام الموجودة دائمًا في نفس ذراع الهدف (مثلًا، الانعطاف يسارًا دائمًا للعثور على الطعام في الذراع الغربي). استطاعت الفئران حل هذه المهمة إما بتعلم استجابة دوران ثابتة للجسم أو بالقيام بأي استجابة ضرورية للوصول إلى نفس الموقع المكاني. لتحديد الاستراتيجية التي استخدمتها الفئران، أجرى الباحثون اختبارًا استكشافيًا حيث تم إطلاق الحيوانات من ذراع البداية المقابل (مثلًا، الذراع الشمالي). إذا قامت الحيوانات بالانعطاف المعاكس للوصول إلى موقع الهدف الأصلي، تُصنف على أنها حيوانات مُتعلمة للمكان. أما إذا قامت بنفس الانعطاف الذي قامت به أثناء التدريب (أي الذهاب إلى الذراع المقابل لموقع الهدف الأصلي)، فتُصنف على أنها حيوانات مُتعلمة للاستجابة. تشير الأدلة إلى أنه بعد فترة من التدريب، تُظهر معظم الحيوانات تعلمًا للمكان، بينما بعد تدريب مكثف، تتحول الحيوانات إلى تعلم الاستجابة الاعتيادي ( 34-36 ). ومن المثير للاهتمام أن هذا التحول من تعلم المكان إلى تعلم الاستجابة قد يعكس تحولًا في التشريح العصبي. يتم التوسط في الاستخدام الأولي لتعلم المكان في هذه المهمة بواسطة الحصين والجسم المخطط الظهري الإنسي [DMS ( 36 ، 37 )]، بينما يتم التوسط في استخدام تعلم الاستجابة بعد تدريب مطول بواسطة الجسم المخطط الظهري الجانبي [DLS ( 36 ).
بالإضافة إلى التجارب المبكرة باستخدام متاهة الزائد ( 34 ، 35 )، تم لاحقًا إثبات التحول السلوكي نحو ذاكرة العادة باستخدام نماذج الضغط على الرافعة الإجرائية ( 38-42 ). في مهام التعلم الآلي هذه، تضغط الحيوانات في البداية على الرافعة بشكل مقصود للحصول على النتيجة ، وتتوقف عن الضغط عليها بمجرد انخفاض قيمة النتيجة الغذائية. مع ذلك، بعد تدريب مكثف ، تتحول الحيوانات إلى الاستجابة الاعتيادية وتستمر في الضغط على الرافعة حتى بعد انخفاض قيمة النتيجة الغذائية ( 40 ). وكما تم إثباته في الأصل في متاهة الزائد ( 36 )، قد يُعزى الانتقال من الإدراك إلى العادة في مهام التعلم الآلي أيضًا إلى تحول تشريحي عصبي. يتم التحكم الإدراكي الأولي للسلوك في مهام التعلم الآلي هذه بواسطة الحصين ومنطقة DMS ( 43 ، 44 )، بينما يتم التحكم في الاستجابة الاعتيادية اللاحقة بواسطة منطقة DLS ( 18 ، 45 ، 46 ).
أشار العديد من الباحثين إلى أن التحول التشريحي العصبي نحو ذاكرة العادة، والذي يظهر في مهام المتاهة والتعلم الآلي، قد يكون أيضًا أساس التحول من تعاطي المخدرات الترفيهي إلى الإدمان القهري ( 13 ، 47-50 ) . وتماشيًا مع هذه الفرضية، أثبت الباحثون، بالنسبة لمجموعة متنوعة من المواد المخدرة ، أن منطقة DMS في الدماغ تُسهّل الاستجابة الموجهة نحو الهدف للحصول على تعزيز المخدرات ، بينما تُسهّل منطقة DLS الاستجابة الاعتيادية للحصول على تعزيز المخدرات ( 18 ، 31 ، 51-53 ).
نظراً لارتفاع احتمالية إساءة استخدام بعض العقاقير، فقد أشار الباحثون إلى أن العقاقير المُسببة للإدمان قد تُعزز وظيفة ذاكرة العادات المعتمدة على منطقة DLS، وبالتالي تُسرّع الانتقال من التحكم المعرفي إلى التحكم الاعتيادي في السلوك. وتماشياً مع هذه الفرضية، يُسهّل التعرض المتكرر للأمفيتامين أو الكوكايين الانتقال من الاستجابة الموجهة نحو الهدف إلى الاستجابة الاعتيادية للحصول على الطعام في مهام الضغط على الرافعة الآلية ( 31 ، 54-59 ) . بالإضافة إلى ذلك، ارتبط الضغط على الرافعة للحصول على مواد مُسببة للإدمان (مثل الكحول أو الكوكايين) مقابل مكافأة الطعام باستجابة اعتيادية أكبر مقارنةً بالاستجابة الموجهة نحو الهدف ( 24 ، 60 ، 61 ) . وفي البشر، يُظهر الأفراد المدمنون على الكحول استجابة اعتيادية أكبر في مهمة التعلم الآلي، مقارنةً بالأفراد غير المدمنين ( 62 ). كما لوحظ هذا التعزيز لذاكرة العادات المعتمدة على منطقة DLS بواسطة العقاقير المُسببة للإدمان في مهام تعلم المتاهة لدى القوارض. ارتبط تعاطي الكوكايين والأمفيتامين والكحول بتحسين التعلم في مهام المتاهة المعتمدة على الجسم المخطط الظهري الجانبي (DLS)، أو بزيادة استخدام استراتيجيات الاستجابة المعتمدة على هذا الجسم في نسخ المتاهة ذات الحل المزدوج ( 25 ، 63 ، 64 ). وفي البشر، ارتبط تعاطي المواد المخدرة، بما في ذلك الكحول والتبغ، بزيادة استخدام استراتيجيات الملاحة المعتمدة على الجسم المخطط الظهري في متاهة افتراضية ( 65 ). وبالتالي، قد تُعزز بعض العقاقير المخدرة ذاكرة العادة المعتمدة على الجسم المخطط الظهري الجانبي، وقد يُسرّع هذا النشاط المتزايد لنظام الذاكرة في هذا الجسم الانتقال من تعاطي المخدرات الترفيهي إلى تعاطيها بشكل اعتيادي. وتتفق هذه الآلية المقترحة مع فرضية وايت ( 1 ) الأصلية بأن العقاقير المخدرة قد تُسهّل أحيانًا تعاطيها الذاتي من خلال تعزيز وظائف أنظمة الذاكرة.
التنافس بين أنظمة الذاكرة
على الرغم من إمكانية أن تُعزز العقاقير المُسببة للإدمان ذاكرة العادات بشكل مباشر من خلال تحسين وظيفة منطقة DLS [انظر، على سبيل المثال، المرجع ( 29 )]، إلا أن هناك احتمالًا آخر يتمثل في أن تُعزز هذه العقاقير ذاكرة العادات بشكل غير مباشر عبر تعديل أنظمة الذاكرة الأخرى. وتستند هذه الآلية البديلة إلى فرضية مفادها أنه في بعض مواقف التعلم، تتنافس أنظمة الذاكرة للسيطرة على عملية التعلم، وأنه من خلال إضعاف وظيفة أحد أنظمة الذاكرة، قد تتحسن وظيفة نظام آخر سليم ( 11 ، 66 ). ومن الجدير بالذكر أن الحصين ومنطقة DLS قد يتنافسان أحيانًا للسيطرة على عملية التعلم، حيث يؤدي تلف الحصين إلى تعزيز وظيفة الذاكرة المعتمدة على منطقة DLS ( 5 ، 6 ، 67 ، 68 ). ويمكن أيضًا إثبات التفاعلات التنافسية في مهام الحل المزدوج، حيث يؤدي إضعاف أحد أنظمة الذاكرة إلى استخدام استراتيجية يتوسطها نظام آخر سليم. على سبيل المثال، تُظهر الحيوانات التي أُصيبت بتلف في منطقة DMS استجابة اعتيادية معتمدة على منطقة DLS للحصول على مكافأة غذائية في مهام التعلم الآلي ( 44 ).
بالنظر إلى التفاعلات التنافسية التي قد تنشأ أحيانًا بين أنظمة الذاكرة، يُحتمل أن تُعزز بعض المواد المخدرة ذاكرة العادة المعتمدة على النواة الظهرية الجانبية (DLS) بشكل غير مباشر عن طريق إضعاف آليات الذاكرة الإدراكية التي تتوسطها النواة الظهرية الوسطى (DMS) والحصين. وكما ذُكر سابقًا، يرتبط الكحول بزيادة استخدام ذاكرة العادة المعتمدة على النواة الظهرية الجانبية (DLS) في متاهة ونماذج الضغط على الرافعة الإجرائية ( 24 ، 61 ، 62 ، 64 ، 65 ) . وتشير الأدلة أيضًا إلى أن الكحول يُضعف التعلم في مهام الذاكرة المكانية المعتمدة على الحصين [( 64 ، 69-72 )؛ للمراجعة، انظر المرجع ( 73 )]، وكذلك في مهام التعلم العكسي المعتمدة على النواة الظهرية الوسطى (DMS ) ( 74-77 ). وتماشيًا مع التفاعل التنافسي بين أنظمة الذاكرة، يُفترض أن الكحول قد يُسهل ذاكرة العادة المعتمدة على النواة الظهرية الجانبية (DLS) بشكل غير مباشر عن طريق إضعاف آليات الذاكرة الإدراكية ( 78 ).
تجدر الإشارة إلى أنه إلى جانب الكحول، ارتبطت العديد من المخدرات بنقص الذاكرة الإدراكية. فالتعرض للمورفين، أو الهيروين، أو الميثامفيتامين، أو الإكستاسي (MDMA)، أو تعاطي الكوكايين المزمن، يُحدث على نحو مماثل ضعفًا في الذاكرة المكانية المعتمدة على الحصين في مختلف المهام ( 79-89 ) . ومن المغري التكهن بأنه، كما هو الحال مع الكحول، قد يُعزز ضعف الذاكرة الإدراكية الناتج عن المخدرات الإدمانية بشكل غير مباشر ذاكرة العادة المعتمدة على منطقة DLS، وأن هذه قد تكون إحدى الآليات التي تسمح بتحول تعاطي المخدرات إلى عادة لدى مدمني المخدرات. من ناحية أخرى، من الممكن أيضًا أن يحدث نقص التعلم المكاني الناتج عن المخدرات الإدمانية بشكل غير مباشر عبر تعزيز عمليات الذاكرة المعتمدة على منطقة DLS. وتماشياً مع هذه الفرضية، فإن تحفيز نشاط CREB في DLS يضعف الذاكرة المكانية المعتمدة على الحصين ( 90 )، في حين أن تثبيط نشاط CREB في DLS يعكس ضعف الذاكرة المكانية الناتج عن المورفين ( 91 ).
دور الاجهاد والقلق
من الاعتبارات الإضافية المتعلقة بنهج أنظمة الذاكرة المتعددة في دراسة إدمان المخدرات ، دور الإجهاد. تشير الأدلة المتضافرة إلى أن الاستثارة العاطفية القوية تُسهّل ذاكرة العادة المعتمدة على نظام الذاكرة الموضعي الظهري (DLS) لدى القوارض والبشر [للاطلاع على مراجعات، انظر المراجع ( 9-12)]. يُحسّن تناول الأدوية المُسببة للقلق من تعلم الاستجابة المعتمد على نظام الذاكرة الموضعي الظهري (DLS) في متاهة الماء الزائد (92-97 ) . كما يُلاحظ هذا التحسن في ذاكرة العادة المعتمدة على نظام الذاكرة الموضعي الظهري (DLS) بعد التعرض لعوامل إجهاد سلوكية غير مشروطة [مثل التقييد المزمن، والصدمة الكهربائية في الذيل، ورائحة المفترس، إلخ ( 98-101 ) ] والتعرض لمحفزات مشروطة بالخوف [نغمة سبق ربطها بالصدمة ( 102 ، 103 )]. على الرغم من أن هذا التحسن في ذاكرة العادة الناتج عن الاستثارة العاطفية القوية قد تم إثباته في الأصل لدى القوارض ( 92 ) ، فقد تم إثباته أيضًا على نطاق واسع لدى البشر ( 99 ، 104-110 ).
لا تزال الآليات التي تسمح للتوتر/القلق بتسهيل ذاكرة العادات غير معروفة إلى حد كبير؛ ومع ذلك، تشير الأدلة إلى دور تعديلي حاسم للوزة الدماغية الجانبية القاعدية ( 93-95 ، 100 ). وتماشياً مع التفاعل التنافسي بين أنظمة الذاكرة، تشير بعض الأدلة أيضاً إلى أن التوتر/القلق قد يعزز ذاكرة العادات المعتمدة على النواة الظهرية الجانبية بشكل غير مباشر عن طريق إضعاف وظيفة الحصين ( 94 ، 95 ).
قد يكون تعزيز ذاكرة العادات بعد التعرض للضغط النفسي أو القلق ذا صلة بفهم بعض العوامل البارزة المؤدية إلى تعاطي المخدرات. فعلى وجه التحديد، ترتبط أحداث الحياة الضاغطة أو فترات التوتر/القلق المزمنة والمطولة بزيادة قابلية الإدمان على المخدرات والانتكاس لدى البشر ( 111-117 ) ، وقد لوحظت نتائج مماثلة في نماذج حيوانية لتعاطي المخدرات ذاتيًا [للمراجعة، انظر المرجع ( 118 )]. وقد أشار الباحثون إلى أنه بما يتوافق مع تأثير الاستثارة العاطفية على أنظمة الذاكرة المتعددة ( 10 )، فإن الضغط النفسي الحاد أو المزمن قد يعزز الإدمان على المخدرات والانتكاس لدى البشر من خلال تنشيط عمليات ذاكرة العادات المعتمدة على الجسم المخطط الظهري ( 9 ، 49 ، 119 ). وتماشيًا مع هذا الاقتراح، يرتبط الضغط النفسي لدى الأفراد المدمنين على الكوكايين بانخفاض نشاط التصوير بالرنين المغناطيسي الوظيفي المعتمد على مستوى الأكسجين في الدم (BOLD) في الحصين وزيادة النشاط في الجسم المخطط الظهري، وترتبط هذه التغيرات في نشاط BOLD بالرغبة الشديدة في تعاطي الكوكايين الناتجة عن الضغط النفسي ( 120 ).
مصادر الادمان الناشئة
إلى جانب المخدرات، استُخدمت فرضية أنظمة الذاكرة المتعددة مؤخرًا لفهم مصادر الإدمان الناشئة الأخرى. فعلى سبيل المثال، أدى ارتفاع معدلات السمنة خلال العقود القليلة الماضية إلى زيادة مماثلة في الاهتمام التجريبي، حيث أجرى العديد من الباحثين مقارنات بين إدمان المخدرات والإفراط في تناول الطعام [للاطلاع على مراجعة، انظر المراجع ( 121-123 )]. وقد أشارت بعض الأدلة الحديثة إلى أنه، كما هو الحال مع إدمان المخدرات، قد يُعزى إدمان الطعام جزئيًا إلى زيادة نشاط ذاكرة العادة المعتمدة على النواة الظهرية الجانبية للدماغ . ففي الفئران ، يُسهّل استهلاك الطعام بنهم التحول من التحكم المعرفي إلى التحكم الاعتيادي في السلوك ( 124 ، 125 ). علاوة على ذلك، يرتبط السلوك الاعتيادي لدى الحيوانات التي تُفرط في تناول الطعام بزيادة نشاط النواة الظهرية الجانبية للدماغ، ويمكن منعه عن طريق حجب مستقبلات AMPA أو مستقبلات الدوبامين D1 في هذه النواة ( 125 ). كما رُبطت السمنة الناتجة عن النظام الغذائي مؤخرًا باستخدام ذاكرة العادة في مهمة متاهة على شكل حرف Y ( 126 ).
يُعدّ إدمان ألعاب الفيديو اضطرابًا سلوكيًا ناشئًا آخر يُشابه بعض سمات إدمان المخدرات [للاطلاع على مراجعة، انظر المرجع ( 127 )]. وكما هو الحال مع إدمان المخدرات، يرتبط الإفراط في لعب ألعاب الفيديو لفترات طويلة بانخفاض ارتباط مستقبلات الدوبامين D2 في الجسم المخطط الظهري ( 128 ). كما يرتبط لعب ألعاب الفيديو بزيادة تنشيط الجسم المخطط الظهري ( 129 ، 130 )، وتُشير أحجام الجسم المخطط الظهري الأكبر إلى مستويات أعلى من مهارة لعب ألعاب الفيديو ( 131 ). يُرجّح أن يستخدم الأشخاص الذين يلعبون ألعاب الفيديو الحركية بانتظام ذاكرة العادة المعتمدة على الجسم المخطط الظهري في متاهة افتراضية ( 132 )، ويؤدي لعب ألعاب الفيديو قبل التدريب إلى الاستجابة الاعتيادية بدلًا من الاستجابة الموجهة نحو الهدف في مهمة اتخاذ قرار من مرحلتين ( 133 ). وبالتالي، وكما هو مقترح بالنسبة للمخدرات، قد يُعزز لعب ألعاب الفيديو إدمان ألعاب الفيديو من خلال تنشيط نظام ذاكرة العادة المعتمد على الجسم المخطط الظهري الجانبي.
أخيرًا، قد يكون نهج أنظمة الذاكرة المتعددة مفيدًا أيضًا لفهم إدمان الماريجوانا. فعلى الرغم من أن احتمالية إساءة استخدام الماريجوانا قد تكون أقل من المواد غير المشروعة الأخرى التي تُدرس عادةً في سياق أبحاث إدمان المخدرات (مثل الكوكايين والمورفين والهيروين وغيرها)، إلا أن الاستخدام المفرط للقنب قد يُؤدي إلى الاعتماد على المخدرات وظهور أعراض الانسحاب كما هو الحال مع أنواع أخرى من المخدرات ( 134-137 ). وقد أشارت دراسات حديثة إلى أن إدمان الماريجوانا قد يُعزى جزئيًا إلى زيادة تفعيل ذاكرة العادة المعتمدة على منطقة DLS ( 138 ) . فبينما يُضعف التعرض الحاد للقنب وظيفة الذاكرة المعتمدة على منطقة DLS ( 139 ، 140 )، يؤدي التعرض المتكرر للقنب إلى زيادة الاستجابة الاعتيادية المعتمدة على منطقة DLS في مهمة التعلم الآلي ( 141 ). بالإضافة إلى ذلك، يُظهر مستخدمو القنب بكثرة تنشيطًا أكبر للمخطط الظهري، مقارنة بغير المستخدمين، عند أداء نسخة الماريجوانا من مهمة الارتباط الضمني ( 142 )، ومن المرجح أن يستخدم المشاركون الذين لديهم تاريخ من استخدام القنب ذاكرة العادة المعتمدة على المخطط الظهري في المتاهة الافتراضية ( 65 ).
بالنظر إلى نجاح تطبيق منهج أنظمة الذاكرة على مصادر الإدمان الناشئة، فمن المنطقي افتراض أن أنظمة ذاكرة متعددة قد تكون متورطة أيضًا في اضطرابات سلوكية أخرى مرتبطة بالإدمان، مثل التسوق القهري، وإدمان الإنترنت، والإدمان الجنسي. وفي الواقع، حظي مدى فائدة منهج أنظمة الذاكرة في فهم القمار المرضي ببعض الاهتمام ( 143 ، 144 ).
خاتمة
أكدت عشرون عامًا من الأدلة التجريبية إلى حد كبير صحة منهج وايت ( 1 ) القائم على أنظمة الذاكرة المتعددة في دراسة إدمان المخدرات. تشير الأدلة إلى أن الحصين يُساهم في التحكم السياقي في تعاطي المخدرات ذاتيًا، وأن النواة الظهرية الجانبية (DLS) تُساهم في الاستجابة الاعتيادية للمثير-الاستجابة (S-R) للحصول على تعزيز المخدرات، وأن اللوزة الدماغية تُساهم في البحث المشروط عن المخدرات. بالإضافة إلى ذلك، أدت الأبحاث اللاحقة إلى رؤى إضافية حول منظور أنظمة الذاكرة المتعددة لإدمان المخدرات، بما في ذلك التحول إلى ذاكرة العادة، والتنافس بين أنظمة الذاكرة، ودور التوتر والقلق.
ينبغي أن تسعى الأبحاث المستقبلية إلى دمج منهج أنظمة الذاكرة مع نظريات أخرى للإدمان، مثل عمليات التحفيز المتضادة ( 145 ). كما سيكون من المفيد إدراج سمات إضافية للإدمان ضمن منظور أنظمة الذاكرة، مثل الاعتماد على المخدرات، والتحمل، وأعراض الانسحاب. مع أن هذه المراجعة ركزت بشكل أساسي على مناطق الدماغ التي تناولها وايت في الأصل (أي الحصين، والجسم المخطط الظهري، واللوزة الدماغية)، تجدر الإشارة إلى أن مناطق دماغية أخرى مرتبطة بالتعلم والذاكرة قد ثبت تورطها بشكل حاسم في إدمان المخدرات والانتكاس، بما في ذلك القشرة الجبهية الإنسية والنواة المتكئة [للاطلاع على مراجعة، انظر المرجع ( 13 )]. وأخيرًا، مع أن هذا الأمر خارج نطاق هذه المراجعة، تجدر الإشارة إلى أن أدلة واسعة النطاق تشير إلى أن التغيرات الخلوية والجزيئية في نظام الدوبامين في الدماغ المتوسط تساهم أيضًا في الإدمان ( 146 ).
على الرغم من صعوبة التحكم في ذكريات العادات، تشير بعض الأدلة إلى إمكانية كبح الذاكرة المعتمدة على منطقة DLS، بمجرد اكتسابها، في بعض الحالات ( 147 ) أو حتى عكسها ( 148 ، 149 ). لذا، من الممكن تكييف التدخلات الدوائية والإجراءات السلوكية التي تؤدي إلى عكس أو كبح ذاكرة العادات في النماذج الحيوانية للتعلم، لعلاج إدمان المخدرات والانتكاس لدى البشر.
الكاتب الاشتراكات
ساهم كل من JG و MP في أفكار وكتابة للمراجعة المصغّرة الحالية.
بيان تضارب المصالح
يعلن المؤلفون أن البحث أجري في غياب أي علاقات تجارية أو مالية يمكن تفسيرها على أنها تضارب مصالح محتمل.
مراجع حسابات
1. وايت، ن.م. المخدرات الإدمانية كمعززات: تأثيرات جزئية متعددة على أنظمة الذاكرة. الإدمان (1996) 91 (7): 921-50. doi: 10.1111/j.1360-0443.1996.tb03586.x
2. وايت، ن.م.، وماكدونالد، ر.ج. أنظمة ذاكرة متوازية متعددة في دماغ الفأر. علم الأحياء العصبي للتعلم والذاكرة (2002) 77 (2): 125-84. doi:10.1006/nlme.2001.4008
3. سكواير، إل آر. أنظمة الذاكرة في الدماغ: تاريخ موجز ومنظور حالي. علم الأحياء العصبي للتعلم والذاكرة (2004) 82 (3): 171-7. doi:10.1016/j.nlm.2004.06.005
4. وايت، ن.م.، باكارد، م.ج.، ماكدونالد، ر.ج. تفكك أنظمة الذاكرة: تتكشف القصة. علم الأعصاب السلوكي (2013) 127 (6): 813-34. doi:10.1037/a0034859
5. باكارد إم جي، هيرش آر، وايت إن إم. التأثيرات التفاضلية لآفات القبو والنواة المذنبة على مهمتين من مهام المتاهة الشعاعية: دليل على وجود أنظمة ذاكرة متعددة. مجلة علم الأعصاب (1989) 9 (5): 1465-72.
٦. ماكدونالد آر جيه، وايت إن إم. تفكك ثلاثي لأنظمة الذاكرة: الحصين، واللوزة الدماغية، والجسم المخطط الظهري. علم الأعصاب السلوكي (١٩٩٣) ١٠٧ (١): ٣-٢٢. doi:10.1037/0735-7044.107.1.3
7. مارين س. علم الأحياء العصبي لتكييف الخوف البافلوفي. المجلة السنوية لعلم الأعصاب (2001) 24 (1): 897-931. doi:10.1146/annurev.neuro.24.1.897
٨. ماكغاو، جيه إل. اللوزة الدماغية تُعدّل ترسيخ ذكريات التجارب المثيرة عاطفيًا. المجلة السنوية لعلم الأعصاب (٢٠٠٤) ٢٧ : ١-٢٨. doi:10.1146/annurev.neuro.27.070203.144157
9. باكارد، إم جي. القلق والإدراك والعادة: منظور أنظمة الذاكرة المتعددة. أبحاث الدماغ (2009) 1293 : 121-8. doi:10.1016/j.brainres.2009.03.029
10. باكارد إم جي، وجودمان جيه. الإثارة العاطفية وأنظمة الذاكرة المتعددة في دماغ الثدييات. فرونت بيهيف نيوروساينس (2012) 6 : 14. doi:10.3389/fnbeh.2012.00014
١١. باكارد إم جي، وجودمان جيه. العوامل المؤثرة على الاستخدام النسبي لأنظمة الذاكرة المتعددة. الحصين (٢٠١٣) ٢٣ (١١): ١٠٤٤-١٠٥٢. doi:10.1002/hipo.22178
١٢. شواب، ل. الإجهاد وتفعيل أنظمة الذاكرة المتعددة: دمج الدراسات الحيوانية والبشرية. الحصين (٢٠١٣) ٢٣ (١١): ١٠٣٥-١٠٤٣. doi:10.1002/hipo.22175
13. إيفريت بي جيه، روبنز تي دبليو. الأنظمة العصبية للتعزيز في إدمان المخدرات: من الأفعال إلى العادات إلى الإكراه. نات نيوروساينس (2005) 8 (11): 1481-9. doi:10.1038/nn1579
١٤. فوكس، ر. أ.، إيفانز، ك. أ.، ليدفورد، س. س.، باركر، م. ب.، كيس، ج. م.، ميهتا، ر. هـ.، وآخرون. دور القشرة الجبهية الظهرية الإنسية، واللوزة القاعدية الجانبية، والحصين الظهري في استعادة سلوك البحث عن الكوكايين في الفئران في سياق معين. علم الأدوية النفسية العصبية (٢٠٠٥) ٣٠ (٢): ٢٩٦-٣٠٩. doi:10.1038/sj.npp.1300579
15. فوكس، ر. أ.، إيدي، ج. ل.، سو، ز. إ.، بيل، ج. هـ. تفاعلات اللوزة القاعدية الجانبية مع الحصين الظهري وقشرة الفص الجبهي الظهرية الوسطى تنظم عودة سلوك البحث عن الكوكايين لدى الفئران نتيجةً لتأثير سياق تعاطي المخدرات. المجلة الأوروبية لعلم الأعصاب (2007) 26 (2): 487-98. doi:10.1111/j.1460-9568.2007.05674.x
١٦. كرامار سي بي، باربانو إم إف، ميدينا جيه إتش. مستقبلات الدوبامين D1/D5 في الحصين الظهري ضرورية لاكتساب وتعبير ذاكرة مرتبطة بتجربة واحدة للكوكايين. علم الأحياء العصبي للتعلم والذاكرة (٢٠١٤) ١١٦ : ١٧٢-١٨٠. doi:10.1016/j.nlm.2014.10.004
١٧. زاباتا أ، ميني في إل، شيبنبرغ تي إس. التحول من البحث عن الكوكايين الموجه نحو هدف إلى البحث الاعتيادي بعد تجربة مطولة في الفئران. مجلة علم الأعصاب (٢٠١٠) ٣٠ (٤٦): ١٥٤٥٧-٦٣. doi:10.1523/JNEUROSCI.4072-10.2010
١٨. كوربيت إل إتش، ني إتش، جاناك بي إتش. البحث عن الكحول بشكل اعتيادي: المسار الزمني ومساهمة المناطق الفرعية من الجسم المخطط الظهري. الطب النفسي البيولوجي (٢٠١٢) ٧٢ (٥): ٣٨٩-٣٩٥. doi:10.1016/j.biopsych.2012.02.024
١٩. وايتلو، آر. بي.، ماركو، أ.، روبنز، تي. دبليو.، إيفريت، بي. جيه. تؤدي الآفات السمية العصبية في اللوزة القاعدية الجانبية إلى إعاقة اكتساب سلوك البحث عن الكوكايين في ظل جدول تعزيز من الدرجة الثانية. علم الأدوية النفسية (١٩٩٦) ١٢٧ (١-٢): ٢١٣-٢٢٤. doi:10.1007/BF02805996
٢٠. ألديرسون، إتش إل، روبنز، تي دبليو، إيفريت، بي جيه. تأثيرات الآفات السمية العصبية في اللوزة القاعدية الجانبية على اكتساب سلوك البحث عن الهيروين لدى الفئران. علم الأدوية النفسية (٢٠٠٠) ١٥٣ (١): ١١١-١١٩. doi:10.1007/s002130000527
٢١. غابرييل أ، سي ر. إي. تعطيل اللوزة القاعدية الجانبية بشكل عكسي، وليس النواة الذنبية الظهرية الجانبية، يُضعف توطيد التعلم الترابطي بين الكوكايين والإشارات في نموذج إعادة تنشيط سلوك البحث عن المخدرات. المجلة الأوروبية لعلم الأعصاب (٢٠١٠) ٣٢ (٦): ١٠٢٤-١٠٢٩. doi:10.1111/j.1460-9568.2010.07394.x
٢٢. سياشيا جيه إم، ريس آر إم، جاناك بي إتش، شودري إن. إن السعي وراء الكحول المُحفَّز بإشارات بافلوفية منفصلة يتعزز في سياقات الكحول ويتوسطه إشارات الغلوتامات في اللوزة القاعدية الجانبية. علم الأدوية النفسية العصبية (٢٠١٥) ٤٠ : ٢٨٠١-١٢. doi:10.1038/npp.2015.130
23. باكارد إم جي، تيذر إل إيه. تعديل اللوزة الدماغية لأنظمة الذاكرة المتعددة: الحصين والنواة المذنبة-البطامة. علم الأحياء العصبي للتعلم والذاكرة (1998) 69 (2): 163-203. doi:10.1006/nlme.1997.3815
24. ديكنسون أ، وود ن، سميث ج. و. البحث عن الكحول لدى الفئران: فعل أم عادة؟ المجلة الفصلية لعلم النفس التجريبي ب (2002) 55 (4): 331-48. doi:10.1080/0272499024400016
٢٥. أودو تي، أوغالدي إف، دي بيترو إن، إيشنباوم إتش بي، كانتاك كيه إم. تأثيرات تعاطي الكوكايين الذاتي المستمر على التعلم المعتمد على اللوزة الدماغية والتعلم المعتمد على الجسم المخطط الظهري في الفئران. علم الأدوية النفسية (٢٠٠٤) ١٧٤ (٢): ٢٣٧-٢٤٥. doi:10.1007/s00213-003-1734-1
26. وود إس سي، فاي جيه، سيج جيه آر، أناغنوستاراس إس جي. الكوكايين وتكييف الخوف البافلوفي: تحليل تأثير الجرعة. بحوث الدماغ السلوكية (2007) 176 (2): 244-50. doi:10.1016/j.bbr.2006.10.008
27. وود إس سي، أناغنوستاراس إس جي. الذاكرة والمنشطات النفسية: تعديل التكييف الشرطي البافلوفي للخوف بواسطة الأمفيتامين في فئران C57BL/6. علم الأدوية النفسية (2009) 202 (1-3): 197-206. doi:10.1007/s00213-008-1185-9
٢٨. إينيغيز إس دي، تشارنتيكوف إس، بايلا إس إيه، هربرت إم إس، بولانوس-غوزمان سي إيه، كروفورد سي إيه. التعرض للكوكايين بعد التدريب يُسهّل توطيد الذاكرة المكانية لدى فئران C57BL/6. الحصين (٢٠١٢) ٢٢ (٤): ٨٠٢-٨١٣. doi:10.1002/hipo.20941
٢٩. ديبوي إل، داوت آر، بريغمان جيه إل، ماكفرسون كيه، كراولي إن، غوندوز-سينار أو، وآخرون. يُحدث تعاطي الكحول المزمن تكيفات عصبية لتحفيز التعلم في الجسم المخطط الظهري. وقائع الأكاديمية الوطنية للعلوم في الولايات المتحدة الأمريكية (٢٠١٣) ١١٠ (٣٦): ١٤٧٨٣-١٤٧٨٨. doi:10.1073/pnas.1308198110
٣٠. ليري ف، نحاس إ، هندرسون ك، لايمبير س ل، باركر ل أ، وايت ن م. تأثيرات الهيروين والأمفيتامين بعد التدريب على ترسيخ تعلم البقاء عند الفوز وتكييف الخوف. مجلة علم الأدوية النفسية (٢٠١٣) ٢٧ (٣): ٢٩٢-٣٠١. doi:10.1177/0269881112472566
31. شميتزر-توربرت ن، أبوستوليديس س، أموا ر، أورير س، كاستر م، ستورز ج، وآخرون. يُسهّل تعاطي الكوكايين بعد التدريب اكتساب العادات ويتطلب القشرة تحت الحوفية والجسم المخطط الظهري الجانبي. علم الأحياء العصبي للتعلم والذاكرة (2015) 118 : 105-12. doi:10.1016/j.nlm.2014.11.007
32. نولتون، بي جيه. العقد القاعدية: تكوين العادات. في: جاغر، دي، ويونغ، آر، محرران. موسوعة علم الأعصاب الحاسوبي . نيويورك: سبرينغر (2014). ص 1-17.
33. تولمان إي سي، ريتشي بي إف، كاليش دي. دراسات في التعلم المكاني. الجزء الرابع: نقل تعلم المكان إلى مسارات بداية أخرى. مجلة علم النفس التجريبي (1947) 37 (1): 39-47. doi:10.1037/h0062061
34. ريتشي، ب. ف.، إيشليمان، ب.، بيرس، ب. دراسات في التعلم المكاني. 8. أداء المكان واكتساب سمات المكان. مجلة علم النفس الفيزيولوجي المقارن (1950) 43 (2): 73-85. doi:10.1037/h0055224
35. هيكس، إل إتش. آثار التدريب المفرط على اكتساب وعكس تعلم المكان والاستجابة. تقارير علم النفس (1964) 15 (2): 459-62. doi:10.2466/pr0.1964.15.2.459
36. باكارد إم جي، ماكغاو جيه إل. تعطيل الحصين أو النواة المذنبة باستخدام الليدوكائين يؤثر بشكل مختلف على التعبير عن تعلم المكان والاستجابة. علم الأحياء العصبي للتعلم والذاكرة (1996) 65 (1): 65-72. doi:10.1006/nlme.1996.0007
37. ين إتش إتش، نولتون بي جيه. مساهمات المناطق الفرعية للمخطط في تعلم المكان والاستجابة. مجلة التعلم والذاكرة (2004) 11 (4): 459-63. doi:10.1101/lm.81004
38. آدامز، سي دي، وديكنسون، أ. الاستجابة الآلية بعد انخفاض قيمة المعزز. المجلة الفصلية لعلم النفس التجريبي (1981) 33ب : 109-12. doi:10.1080/14640748108400816
39. آدامز، سي دي، وديكنسون، أ. الأفعال والعادات: اختلافات في التمثيلات الترابطية أثناء التعلم الآلي. في: سبير، إن إي، وميلر، آر آر، محرران. معالجة المعلومات في الحيوانات: آليات الذاكرة . هيلزديل، نيوجيرسي: إيرلبوم (1981). ص 143-65.
40. آدامز، سي دي. اختلافات في حساسية الاستجابة الآلية لانخفاض قيمة المعزز. المجلة الفصلية لعلم النفس التجريبي (1982) 34ب : 77-98. doi:10.1080/14640748208400878
٤١. ديكنسون أ، نيكولاس دي جيه. التعلم التحفيزي غير ذي الصلة أثناء التكييف الآلي: دور علاقات الدافع-المعزز والاستجابة-المعزز. المجلة الفصلية لعلم النفس التجريبي (١٩٨٣) ٣٥ب : ٢٤٩-٢٦٣. doi:10.1080/14640748308400909
٤٢. ديكنسون أ، نيكولاس دي جيه، آدامز سي دي. تأثيرات الارتباط الأدائي على قابلية التأثر بتقليل قيمة المعزز. المجلة الفصلية لعلم النفس التجريبي (١٩٨٣) ٣٥ب : ٣٥-٥١. doi:10.1080/14640748308400912
43. كوربيت إل إتش، بالين بي دبليو. دور الحصين في التكييف الآلي. مجلة علم الأعصاب (2000) 20 (11):4233-9.
٤٤. ين إتش إتش، أوستلوند إس بي، نولتون بي جيه، بالين بي دبليو. دور الجسم المخطط الظهري الإنسي في التكييف الآلي. المجلة الأوروبية لعلم الأعصاب (٢٠٠٥) ٢٢ : ٥١٣-٥٢٣. doi:10.1111/j.1460-9568.2005.04218.x
٤٥. ين إتش إتش، نولتون بي جيه، بالين بي دبليو. آفات الجسم المخطط الظهري الجانبي تحافظ على توقع النتائج ولكنها تعطل تكوين العادة في التعلم الآلي. المجلة الأوروبية لعلم الأعصاب (٢٠٠٤) ١٩ : ١٨١-١٨٩. doi:10.1111/j.1460-9568.2004.03095.x
٤٦. كوين جيه جيه، بيتنجر سي، لي إيه إس، بيرسون جيه إل، تايلور جيه آر. العادات المعتمدة على الجسم المخطط غير حساسة لكل من الزيادات والنقصان في قيمة المعزز لدى الفئران. المجلة الأوروبية لعلم الأعصاب (٢٠١٣) ٣٧ : ١٠١٢-٢١. doi:10.1111/ejn.12106
47. ين إتش إتش. من الأفعال إلى العادات: التكيفات العصبية المؤدية إلى الإدمان. أبحاث الكحول والصحة (2008) 31 (4):340-4.
٤٨. بيلين د، جونكمان س، ديكنسون أ، روبنز ت.و، إيفريت ب.ج. عمليات التعلم المتوازية والتفاعلية داخل العقد القاعدية: أهميتها في فهم الإدمان. بحوث الدماغ السلوكية (٢٠٠٩) ١٩٩ (١): ٨٩-١٠٢. doi:10.1016/j.bbr.2008.09.027
٤٩. شواب إل، ديكنسون أ، وولف أو تي. الإجهاد، والعادات، وإدمان المخدرات: منظور نفسي عصبي غدي. علم الأدوية النفسية السريرية التجريبية (٢٠١١) ١٩ (١): ٥٣-٦٣. doi:10.1037/a0022212
٥٠. هوغارث إل، بالين بي دبليو، كوربيت إل إتش، كيلكروس إس. آليات التعلم الترابطي التي تدعم الانتقال من تعاطي المخدرات الترفيهي إلى الإدمان. حوليات أكاديمية نيويورك للعلوم (٢٠١٣) ١٢٨٢ (١): ١٢-٢٤. doi:10.1111/j.1749-6632.2012.06768.x
51. موراي جيه إي، بيلين دي، إيفريت بي جيه. الانفصال المزدوج للتحكم الظهري الإنسي والظهري الوحشي في الجسم المخطط على اكتساب وأداء سلوك البحث عن الكوكايين. علم الأدوية النفسية العصبية (2012) 37 (11): 2456-66. doi:10.1038/npp.2012.104
٥٢. كليمنز كيه جيه، كاستينو إم آر، كورنيش جيه إل، جودتشايلد إيه كيه، هولمز إن إم. الركائز السلوكية والعصبية لتكوين العادة لدى الفئران التي تتعاطى النيكوتين ذاتيًا عن طريق الحقن الوريدي. علم الأدوية النفسية العصبية (٢٠١٤) ٣٩ : ٢٥٨٤-٢٥٩٣. doi:10.1038/npp.2014.111
٥٣. كوربيت إل إتش، ني إتش، جاناك بي إتش. يعتمد الاستجابة الاعتيادية للكحول على إشارات مستقبلات AMPA وD2 في الجسم المخطط الظهري الجانبي. فرونت بيهيف نيوروساينس (٢٠١٤) ٨ : ٣٠١. doi:10.3389/fnbeh.2014.00301
54. شونباوم، جي، وسيتلو، بي. الكوكايين يجعل الأفعال غير حساسة للنتائج ولكن ليس للانطفاء: الآثار المترتبة على تغير وظيفة الفص الجبهي الحجاجي واللوزة الدماغية. قشرة المخ (2005) 15 (8): 1162-9. doi:10.1093/cercor/bhh216
55. نيلسون أ، كيلكروس س. التعرض للأمفيتامين يعزز تكوين الإدمان. مجلة علم الأعصاب (2006) 26 (14): 3805-12. doi:10.1523/JNEUROSCI.4305-05.2006
56. Nordquist RE، Voorn P، De Mooij-van Malsen JG، Joosten RNJMA، Pennartz CMA، Vanderschuren LJMJ. زيادة قيمة التعزيز وتكوين العادة المتسارعة بعد العلاج المتكرر للأمفيتامين. يورو نيوروبسايكوفارماكول (2007) 17 (8):532–40. دوى:10.1016/j.euroneuro.2006.12.005
٥٧. ليبلانك كيه إتش، ميدمنت إن تي، أوستلوند إس بي. التعرض المتكرر للكوكايين يُسهّل ظهور الدافع التحفيزي ويُحفّز التحكم الاعتيادي لدى الفئران. PLoS One (٢٠١٣) ٨ : e٦١٣٥٥. doi:١٠.١٣٧١/journal.pone.٠٠٦١٣٥٥
٥٨. نيلسون إيه جيه، كيلكروس إس. تسارع تكوين العادة بعد التعرض للأمفيتامين ينعكس بواسطة مضادات مستقبلات الدوبامين D1، ولكنه يتعزز بواسطة مضادات مستقبلات الدوبامين D2. فرونت نيوروساينس (٢٠١٣) ٧ : ٧٦. doi:10.3389/fnins.2013.00076
٥٩. كوربيت إل إتش، تشينغ بي سي، بالين بي دبليو. تأثيرات التعرض المتكرر للكوكايين على اكتساب العادات وعكسها بواسطة إن-أسيتيل سيستئين. علم الأدوية النفسية العصبية (٢٠١٤) ٣٩ (٨): ١٨٩٣-١٩٠١. doi:10.1038/npp.2014.37
٦٠. مايلز إف جيه، إيفريت بي جيه، ديكنسون إيه. البحث عن الكوكايين عن طريق الفم لدى الفئران: فعل أم عادة؟ علم الأعصاب السلوكي (٢٠٠٣) ١١٧ (٥): ٩٢٧-٣٨. doi:10.1037/0735-7044.117.5.927
61. مانجيري، ر. أ.، كوفريسي، ر. يو.، غونزاليس، ر. أ. البحث عن الإيثانول لدى فئران لونغ إيفانز ليس دائمًا سلوكًا موجهًا نحو هدف. PLoS One (2012) 7 : e42886. doi:10.1371/journal.pone.0042886
٦٢. سيوردز ز، دي ويت س، فان دين برينك و، روبنز ت و، بيكمان أ ت ف، بينيكس ب و ج هـ، وآخرون. أدلة سلوكية وتصوير عصبي على الاعتماد المفرط على تعلم العادات لدى مرضى إدمان الكحول. الطب النفسي الانتقالي (٢٠١٣) ٣ (١٢): هـ٣٣٧. doi:10.1038/tp.2013.107
63. باكارد إم جي، ماكغاو جيه إل. تناول الكينبيرول والأمفيتامين بعد التدريب يعزز الذاكرة المتعلقة بالتمييز المكاني والتمييز الموجه في متاهة مائية. علم النفس البيولوجي (1994) 22 (1): 54-60.
٦٤. ماثيوز دي بي، إيلجن إم، وايت إيه إم، بيست بي جيه. تناول الإيثانول الحاد يُضعف الأداء المكاني بينما يُحسّن الأداء غير المكاني لدى الفئران. علم الأحياء العصبي للتعلم والذاكرة (١٩٩٩) ٧٢ (٣): ١٦٩-١٧٩. doi:10.1006/nlme.1998.3900
٦٥. بوهبوت، ف. د.، بالسو، د.، كونراد، ك.، كونيشي، ك.، ليتون، م. ترتبط استراتيجيات الملاحة المعتمدة على النواة المذنبة بزيادة تعاطي المخدرات. الحصين (٢٠١٣) ٢٣ (١١): ٩٧٣-٩٨٤. doi:10.1002/hipo.22187
٦٦. بولدراك، ر. أ.، وباكارد، م. ج. التنافس بين أنظمة الذاكرة المتعددة: أدلة متقاربة من دراسات الدماغ على الحيوانات والبشر. علم النفس العصبي (٢٠٠٣) ٤١ (٣): ٢٤٥-٢٥١. doi:10.1016/S0028-3932(02)00157-4
٦٧. ماثيوز دي بي، بيست بي جيه. آفات الفيمبريا/فورنيكس تُسهّل تعلّم مهمة استجابة غير مكانية. مجلة علم النفس الإدراكي (١٩٩٥) ٢ (١): ١١٣-١١٦. doi:10.3758/BF03214415
٦٨. شرودر جيه بي، وينغارد جيه سي، باكارد إم جي. تعطيل الحصين القابل للعكس بعد التدريب يكشف عن تداخل بين أنظمة الذاكرة. الحصين (٢٠٠٢) ١٢ (٢): ٢٨٠-٢٨٤. doi:10.1002/hipo.10024
٦٩. ماثيوز دي بي، سيمسون بي إي، بيست بي جيه. يُضعف الإيثانول الحاد الذاكرة المكانية، لكنه لا يؤثر على ذاكرة الاستجابة للمثير في الفئران. مجلة أبحاث الكحول السريرية والتجريبية (١٩٩٥) ١٩ (٤): ٩٠٢-٩٠٩. doi:10.1111/j.1530-0277.1995.tb00965.x
70. وايت إيه إم، إليك تي إم، بيلتز تي إل، بيست بي جيه. الأداء المكاني أكثر حساسية للإيثانول من الأداء غير المكاني بغض النظر عن قرب الإشارة. مجلة أبحاث الكحول السريرية والتجريبية (1998) 22 (9): 2102-7. doi:10.1111/j.1530-0277.1998.tb05922.x
٧١. ماثيوز دي بي، مورو إيه إل، توكوناغا إس، ماكدانيال جيه آر. تناول الإيثانول الحاد وتناول الألوبيرغنانولون الحاد يُضعفان الذاكرة المكانية في اختبار موريس المائي. مجلة أبحاث الكحول السريرية والتجريبية (٢٠٠٢) ٢٦ (١١): ١٧٤٧-١٧٥١. doi:10.1111/j.1530-0277.2002.tb02479.x
72. بيري آر بي، ماثيوز دي بي. تناول الإيثانول الحاد يُضعف الذاكرة المكانية بشكل انتقائي لدى فئران C57BL/6J. الكحول (2004) 32 (1):9-18. doi:10.1016/j.alcohol.2003.09.005
73. سيلفرز جيه إم، توكوناغا إس، بيري آر بي، وايت إيه إم، ماثيوز دي بي. اضطرابات التعلم المكاني والذاكرة: الإيثانول، والألوبيرغنانولون، والحصين. مجلة أبحاث الدماغ (2003) 43 (3): 275-84. doi:10.1016/j.brainresrev.2003.09.002
٧٤. بادانيتش، ك. أ.، وبيكر، هـ. س.، وودوارد، ج. ج. تأثيرات التعرض المتقطع المزمن للإيثانول على السلوكيات المعتمدة على قشرة الفص الجبهي الحجاجي وقشرة الفص الجبهي الإنسي في الفئران. علم الأعصاب السلوكي (٢٠١١) ١٢٥ (٦): ٨٧٩-٩١. doi:10.1037/a0025922
٧٥. كولمان إل جي جونيور، هي جيه، لي جيه، ستاينر إم، كروز إف تي. يؤدي الإفراط في شرب الكحول لدى المراهقين إلى تغيير التعبير الجيني للناقلات العصبية في دماغ البالغين، والسلوك، وأحجام مناطق الدماغ، والكيمياء العصبية في الفئران. مجلة أبحاث الكحول السريرية والتجريبية (٢٠١١) ٣٥ (٤): ٦٧١-٨٨. doi:10.1111/j.1530-0277.2010.01385.x
٧٦. كوزمين أ، ليليكويست س، ميس ج، شيفر ف، شيبنبرغ ت، باكالكن ج. تناول جرعات معتدلة متكررة من الإيثانول يُضعف الوظائف الإدراكية لدى فئران ويستار. بيولوجيا الإدمان (٢٠١٢) ١٧ (١): ١٣٢-١٤٠. doi:10.1111/j.1369-1600.2010.00224.x
٧٧. كولمان إل جي، ليو دبليو، أوغوز آي، ستاينر إم، كروز إف تي. يؤثر تعاطي الكحول المفرط في سن المراهقة على أحجام مناطق الدماغ لدى البالغين، وبروتين المصفوفة خارج الخلوية القشرية، والمرونة السلوكية. علم الأدوية والكيمياء الحيوية والسلوك (٢٠١٤) ١١٦ : ١٤٢-١٥١. doi:10.1016/j.pbb.2013.11.021
٧٨. ماثيوز دي بي، سيلفرز جيه آر. استخدام تناول الإيثانول الحاد كأداة لدراسة أنظمة الذاكرة المتعددة. علم الأحياء العصبي للتعلم والذاكرة (٢٠٠٤) ٨٢ (٣): ٢٩٩-٣٠٨. doi:10.1016/j.nlm.2004.06.007
79. برونينغ إتش دبليو، مورفورد إل إل، إنمان-وود إس إل، فوكومورا إم، فورهيس سي في. تعتمد اضطرابات التعلم والذاكرة الناجمة عن مادة 3،4-ميثيلين ديوكسي ميثامفيتامين (الإكستاسي) على عمر التعرض خلال مراحل النمو المبكرة. مجلة علم الأعصاب (2001) 21 (9): 3228-35.
٨٠. ويليامز إم تي، مورفورد إل إل، وود إس إل، والاس تي إل، فوكومورا إم، برونينغ إتش دبليو، وآخرون. يُحدث العلاج النمائي بالميثامفيتامين د اضطرابات انتقائية في الملاحة المكانية في الذاكرة المرجعية في متاهة موريس المائية مع الحفاظ على الذاكرة العاملة. سينابس (٢٠٠٣) ٤٨ (٣): ١٣٨-١٤٨. doi:10.1002/syn.10159
٨١. فورهيس سي في، ريد تي إم، سكيلتون إم آر، ويليامز إم تي. التعرض لمادة 3،4-ميثيلين ديوكسي ميثامفيتامين (MDMA) في الأيام ١١-٢٠ بعد الولادة يُحدث عجزًا في الذاكرة المرجعية، وليس في الذاكرة العاملة، في متاهة موريس المائية لدى الفئران: دلالات التعلم السابق. المجلة الدولية لعلم الأعصاب التنموي (٢٠٠٤) ٢٢ (٥): ٢٤٧-٢٥٩. doi:10.1016/j.ijdevneu.2004.06.003
٨٢. كوهين إم إيه، سكيلتون إم آر، شيفر تي إل، غوديلسكي جي إيه، فورهيس سي في، ويليامز إم تي. التعلم والذاكرة بعد التعرض في فترة حديثي الولادة لمادة 3،4-ميثيلين ديوكسي ميثامفيتامين (إكستاسي) في الجرذان: التفاعل مع التعرض في مرحلة البلوغ. سينابس (٢٠٠٥) ٥٧ (٣): ١٤٨-١٥٩. doi:10.1002/syn.20166
٨٣. سكلتون إم آر، ويليامز إم تي، فورهيس سي في. العلاج بمادة MDMA من اليوم الحادي عشر إلى اليوم العشرين بعد الولادة يُعطّل التعلّم المكاني وتعلّم تكامل المسار لدى الفئران اليافعة، ولكنه يُعطّل التعلّم المكاني فقط لدى الفئران الأكبر سنًا. علم الأدوية النفسية (٢٠٠٦) ١٨٩ (٣): ٣٠٧-٣١٨. doi:10.1007/s00213-006-0563-4
٨٤. ما إم إكس، تشين واي إم، هي جيه، زينغ تي، وانغ جيه إتش. تأثيرات المورفين وسحبه على ذاكرة التعرف المكاني في متاهة Y لدى الفئران. علم الأعصاب (٢٠٠٧) ١٤٧ (٤): ١٠٥٩-١٠٦٥. doi:10.1016/j.neuroscience.2007.05.020
٨٥. بيلشر إيه إم، فاينشتاين إي إم، أوديل إس جيه، مارشال جيه إف. تأثيرات الميثامفيتامين على ذاكرة التعرف: مقارنة بين نظامي الجرعات المتصاعدة والجرعات اليومية. علم الأدوية النفسية العصبية (٢٠٠٨) ٣٣ (٦): ١٤٥٣-١٤٦٣. doi:10.1038/sj.npp.1301510
٨٦. ترامولاس م، مارتينيز-كوي س، هورلي م أ. يؤدي تعاطي الهيروين المزمن لدى الفئران إلى زيادة تنظيم البروتينات المرتبطة بموت الخلايا المبرمج في الدماغ، ويضعف التعلم المكاني والذاكرة. علم الأدوية العصبية (٢٠٠٨) ٥٤ (٤): ٦٤٠-٥٢. doi:10.1016/j.neuropharm.2007.11.018
٨٧. نورث أ، سوانت ج، سالفاتور إم إف، غامبل-جورج ج، برينس ب، بتلر ب، وآخرون. التعرض المزمن للميثامفيتامين يُسبب عجزًا متأخرًا وطويل الأمد في الذاكرة. سينابس (٢٠١٣) ٦٧ (٥): ٢٤٥-٢٥٧. doi:10.1002/syn.21635
٨٨. فولي أ، مارتن م، موراليس ل، ديل أولمو ن. آثار تعاطي الكوكايين المزمن خلال فترة المراهقة في فئران لويس وفيشر-٣٤٤: ضعف التعرف على المواقع الجديدة وتغيرات في اللدونة المشبكية في مرحلة البلوغ. علم الأحياء العصبي للتعلم والذاكرة (٢٠١٥) ١٢٣ : ١٧٩-١٨٦. doi:10.1016/j.nlm.2015.06.001
٨٩. تشو م، لو ب، لو ي، لي سي جيه، وانغ دي إس، لو كيو، وآخرون. يؤدي اختلال توازن التعبير عن HCN1 وHCN2 في منطقة CA1 من الحصين إلى إضعاف التعلم المكاني والذاكرة لدى الفئران المعرضة للمورفين بشكل مزمن. مجلة علم الأدوية النفسية العصبية والطب النفسي البيولوجي (٢٠١٥) ٥٦ : ٢٠٧-٢١٤. doi:10.1016/j.pnpbp.2014.09.010
٩٠. كاثيرفيلو ب، كولومبو ب.ج. تأثيرات التعبير عن CREB بوساطة الفيروسات البطيئة في الجسم المخطط الظهري الجانبي: تحسين الذاكرة ودليل على التفاعلات التنافسية والتعاونية مع الحصين. الحصين (٢٠١٣) ٢٣ (١١): ١٠٦٦-١٠٧٤. doi:10.1002/hipo.22188
٩١. بودونات م، غيو ج ل، هوسون م، فانديسكيل م، كوريو م، ديكورت ل، وآخرون. تأثير تعطيل المكافأة الناتجة عن المخدرات على التعلم المكاني وليس التعلم الموجه بالإشارات: دلالة على مسار بروتين كيناز أ/بروتين ربط عنصر استجابة cAMP في الجسم المخطط. مجلة علم الأعصاب (٢٠١١) ٣١ : ١٦٥١٧-٢٨. doi:10.1523/JNEUROSCI.1787-11.2011
٩٢. باكارد إم جي، وينجارد جي سي. اللوزة الدماغية والتعديل "العاطفي" للاستخدام النسبي لأنظمة الذاكرة المتعددة. علم الأحياء العصبي للتعلم والذاكرة (٢٠٠٤) ٨٢ (٣): ٢٤٣-٢٥٢. doi:10.1016/j.nlm.2004.06.008
٩٣. إليوت إيه إي، باكارد إم جي. حقن دواء مُثير للقلق داخل اللوزة الدماغية قبل الاسترجاع يُؤثر على ميل الفئران نحو استخدام ذاكرة العادة. علم الأحياء العصبي للتعلم والذاكرة (٢٠٠٨) ٩٠ (٤): ٦١٦-٢٣. doi:10.1016/j.nlm.2008.06.012
٩٤. وينغارد جيه سي، باكارد إم جي. اللوزة الدماغية والتعديل العاطفي للتنافس بين الذاكرة المعرفية والذاكرة الاعتيادية. بحوث الدماغ السلوكية (٢٠٠٨) ١٩٣ (١): ١٢٦-١٣١. doi:10.1016/j.bbr.2008.05.002
٩٥. باكارد إم جي، غابرييل إيه. حقن الأدوية المُسببة للقلق في الأطراف تؤثر بشكلٍ مُتباين على الذاكرة الإدراكية وذاكرة العادات: دور اللوزة القاعدية الجانبية. علم الأعصاب (٢٠٠٩) ١٦٤ (٢): ٤٥٧-٤٦٢. doi:10.1016/j.neuroscience.2009.07.054
٩٦. ليونغ كيه سي، غودمان جيه، باكارد إم جي. يمنع البوسبيرون التأثير المعزز للدواء المُثير للقلق RS 79948-197 على ترسيخ ذاكرة العادة. بحوث الدماغ السلوكية (٢٠١٢) ٢٣٤ (٢): ٢٩٩-٣٠٢. doi:10.1016/j.bbr.2012.07.009
٩٧. غودمان ج، ليونغ كيه سي، باكارد إم جي. تعزيز الغلوكوكورتيكويد لذاكرة العادة المعتمدة على الجسم المخطط الظهري الجانبي يتطلب نشاطًا نورأدريناليًا متزامنًا. علم الأعصاب (٢٠١٥) ٣١١ : ١-٨. doi:10.1016/j.neuroscience.2015.10.014
٩٨. كيم جيه جيه، لي إتش جيه، هان جيه إس، باكارد إم جي. اللوزة الدماغية ضرورية لتعديل التنشيط طويل الأمد للحصين والتعلم الناتج عن الإجهاد. مجلة علم الأعصاب (٢٠٠١) ٢١ (١٤): ٥٢٢٢-٥٢٢٨.
٩٩. شواب إل، دالم إس، شاخينجر إتش، أويتزل إم إس. يؤثر الإجهاد المزمن على استخدام استراتيجيات التعلم المكاني واستراتيجيات الاستجابة للمثيرات لدى الفئران والبشر. علم الأحياء العصبي للتعلم والذاكرة (٢٠٠٨) ٩٠ (٣): ٤٩٥-٥٠٣. doi:10.1016/j.nlm.2008.07.015
١٠٠. ليونغ كيه سي، باكارد إم جي. يؤثر التعرض لرائحة المفترس على الاستخدام النسبي لأنظمة الذاكرة المتعددة: دور اللوزة القاعدية الجانبية. علم الأحياء العصبي للتعلم والذاكرة (٢٠١٤) ١٠٩ : ٥٦-٦١. doi:10.1016/j.nlm.2013.11.015
١٠١. تايلور إس بي، أنجلين جيه إم، باودي بي آر، ريغرت إيه جي، أوليف إم إف، كونراد سي دي. قد يُسهّل الإجهاد المزمن استقطاب الدوائر العصبية المرتبطة بالعادات والإدمان من خلال إعادة هيكلة الخلايا العصبية في الجسم المخطط. علم الأعصاب (٢٠١٤) ٢٨٠ : ٢٣١-٢٤٢. doi:10.1016/j.neuroscience.2014.09.029
١٠٢. ليونغ كيه سي، غودمان جيه، باكارد إم جي. إعادة التعرض لمثيرات الخوف المشروطة بعد التدريب يعزز توطيد الذاكرة ويوجه الفئران نحو استخدام تعلم الاستجابة المعتمد على الجسم المخطط الظهري الجانبي. بحوث الدماغ السلوكية (٢٠١٥) ٢٩١ : ١٩٥-٢٠٠. doi:10.1016/j.bbr.2015.05.022
١٠٣. غود تي إي، ليونغ كيه سي، غودمان جيه، مارين إس، باكارد إم جي. تعزيز الذاكرة المعتمدة على الجسم المخطط بواسطة الخوف المشروط يتوسطه مستقبلات بيتا الأدرينالية في اللوزة القاعدية الجانبية. علم الأحياء العصبي للإجهاد (قيد النشر). doi:10.1016/j.ynstr.2016.02.004
١٠٤. شواب إل، أويتزل إم إس، فيليبسن سي، ريختر إس، بوهرينغر إيه، ويبيش دبليو، وآخرون. يؤثر الإجهاد على استخدام استراتيجيات التعلم المكاني مقابل استراتيجيات التعلم القائمة على الاستجابة للمثير لدى البشر. مجلة التعلم والذاكرة (٢٠٠٧) ١٤ (١-٢): ١٠٩-١١٦. doi:10.1101/lm.435807
105. شوابي إل، شاشينغر إتش، دي كلويت إي آر، أويزل إم إس. تعمل الكورتيكوستيرويدات كمحول بين أنظمة الذاكرة. جي كوجن نيوروسسي (2010) 22 (7):1362–72. دوى:10.1162/jocn.2009.21278
١٠٦. شواب إل، تيغينتهوف إم، هوفكن أو، وولف أو تي. يؤدي النشاط المتزامن للجلوكوكورتيكويد والنورأدريناليني إلى تحويل السلوك الأدائي من التحكم الموجه نحو الهدف إلى التحكم الاعتيادي. مجلة علم الأعصاب (٢٠١٠) ٣٠ (٢٤): ٨١٩٠-٨١٩٦. doi:10.1523/JNEUROSCI.0734-10.2010
١٠٧. شواب إل، تيغينتهوف إم، هوفكن أو، وولف أو تي. يمنع حجب مستقبلات القشرة المعدنية تعديل أنظمة الذاكرة المتعددة في الدماغ البشري الناتج عن الإجهاد. الطب النفسي البيولوجي (٢٠١٣) ٧٤ (١١): ٨٠١-٨٠٨. doi:10.1016/j.biopsych.2013.06.001
108. شواب إل، وولف أو تي. الإجهاد يحفز السلوك الاعتيادي لدى البشر. مجلة علم الأعصاب (2009) 29 (22): 7191-8. doi:10.1523/JNEUROSCI.0979-09.2009
١٠٩. شواب إل، وولف أو تي. إجهاد الضغط البارد المُقَيَّم اجتماعيًا بعد التعلّم الآلي يُفضِّل العادات على العمل الموجه نحو الهدف. علم النفس العصبي والغدد الصماء (٢٠١٠) ٣٥ (٧): ٩٧٧-٨٦. doi:10.1016/j.psyneuen.2009.12.010
١١٠. غونزل إف إم، وولف أو تي، شواب إل. الجلوكوكورتيكويدات تعزز تكوين ذاكرة الاستجابة للمثير لدى البشر. علم النفس العصبي والغدد الصماء (٢٠١٤) ٤٥ : ٢١-٣٠. doi:10.1016/j.psyneuen.2014.02.015
١١١. هيغينز، آر. إل.، ومارلات، جي. إيه. الخوف من التقييم الاجتماعي كعامل محدد لاستهلاك الكحول لدى الرجال الذين يشربون الكحول اجتماعيًا. مجلة علم النفس غير الطبيعي (١٩٧٥) ٨٤ (٦): ٦٤٤-٥١. doi:10.1037/0021-843X.84.6.644
١١٢. مارلات، جي. أ.، وغوردون، جيه. آر. محددات الانتكاس: آثارها على استدامة تغيير السلوك. في: ديفيدسون، بي. أو.، وديفيدسون، إس. إم.، محرران. الطب السلوكي: تغيير أنماط الحياة . نيويورك: برون/مازيل (١٩٨٠). ص ٤١٠-٤٥٢.
١١٣. نيوكومب، إم دي، وبنتلر، بي إم. أثر تعاطي المراهقين للمخدرات والدعم الاجتماعي على مشاكل الشباب: دراسة طولية. مجلة علم النفس غير الطبيعي (١٩٨٨) ٩٧ : ٦٤-٧٥. doi:10.1037/0021-843X.97.1.64
114. والاس، ب. س. المحددات النفسية والبيئية لانتكاس مدخني الكوكايين. مجلة علاج تعاطي المواد (1989) 6 (2): 95-106. doi:10.1016/0740-5472(89)90047-0
١١٥. كابلان، هـ. ب.، وجونسون، ر. ج. العلاقات بين الظروف المحيطة بتعاطي المخدرات غير المشروعة في البداية وتصاعد تعاطي المخدرات: التأثيرات المعدلة للجنس وتجارب المراهقة المبكرة. في: غلانتز، م.، وبيكنز، ر.، محرران. القابلية لتعاطي المخدرات . واشنطن العاصمة: الجمعية الأمريكية لعلم النفس (١٩٩٢). ص ٢٠٠-٣٥٨.
١١٦. هاريسون، ب. أ.، فولكرسون، ج. أ.، بيبي، ت. ج. تعاطي مواد متعددة بين المراهقين ضحايا الاعتداء الجسدي والجنسي. إساءة معاملة الأطفال وإهمالهم (١٩٩٧) ٢١ : ٥٢٩-٥٣٩. doi:10.1016/S0145-2134(97)00013-6
117. تشيلكوت إتش دي، بريسلاو إن. اضطراب ما بعد الصدمة النفسية واضطرابات تعاطي المخدرات: اختبار المسارات السببية. أرشيف الطب النفسي العام (1998) 55 (10): 913-7. doi:10.1001/archpsyc.55.10.913
118. بيازا، بي. في.، ولو موال، إم. دور الإجهاد في تعاطي الأدوية ذاتيًا. مجلة تريندز فارماكول ساينس (1998) 19 (2): 67-74. doi:10.1016/S0165-6147(97)01115-2
١١٩. غودمان ج، ليونغ كيه سي، باكارد إم جي. التعديل العاطفي لأنظمة الذاكرة المتعددة: دلالات على البيولوجيا العصبية لاضطراب ما بعد الصدمة. مجلة علم الأعصاب (٢٠١٢) ٢٣ (٥-٦): ٦٢٧-٤٣. doi:10.1515/revneuro-2012-0049
١٢٠. سينها ر، لاكادي س، سكودلارسكي ب، فولبرايت ر ك، راونسافيل ب ج، كوستن ت ر، وآخرون. النشاط العصبي المرتبط بالرغبة الشديدة في تعاطي الكوكايين الناتجة عن الإجهاد: دراسة تصوير بالرنين المغناطيسي الوظيفي. علم الأدوية النفسية (٢٠٠٥) ١٨٣ (٢): ١٧١-١٨٠. doi:10.1007/s00213-005-0147-8
١٢١. أفينا، ن.م.، رادا، ب.، هوبل، ب.ج. أدلة على إدمان السكر: التأثيرات السلوكية والكيميائية العصبية لتناول السكر بشكل متقطع ومفرط. مجلة علم الأعصاب والسلوك الحيوي (٢٠٠٨) ٣٢ (١): ٢٠-٣٩. doi:10.1016/j.neubiorev.2007.04.019
١٢٢. جيرهارت، أ. ن.، كوربين، و. ر.، براونيل، ك. د. إدمان الطعام: دراسة لمعايير تشخيص الاعتماد. مجلة طب الإدمان (٢٠٠٩) ٣ (١): ١-٧. doi:10.1097/ADM.0b013e318193c993
١٢٣. سميث دي جي، روبنز تي دبليو. الأسس العصبية البيولوجية للسمنة ونوبات الشراهة: مبرر لاعتماد نموذج إدمان الطعام. الطب النفسي البيولوجي (٢٠١٣) ٧٣ (٩): ٨٠٤-٨١٠. doi:10.1016/j.biopsych.2012.08.026
١٢٤. دي يونغ، جيه دبليو، وميجبوم، كيه إي، وفانديرشورين، إل جيه، وأدان، آر إيه. يرتبط ضعف التحكم في تناول الطعام المستساغ لدى الفئران بالسلوك الاعتيادي وقابلية الانتكاس: اختلافات فردية. PLoS One (٢٠١٣) ٨ (٩):e٧٤٦٤٥. doi:١٠.١٣٧١/journal.pone.٠٠٧٤٦٤٥
١٢٥. فورلونغ تي إم، جاياويرا إتش كيه، بالين بي دبليو، كوربيت إل إتش. إن تناول كميات كبيرة من الطعام الشهي يُسرّع التحكم الاعتيادي في السلوك ويعتمد على تنشيط الجسم المخطط الظهري الجانبي. مجلة علم الأعصاب (٢٠١٤) ٣٤ (١٤): ٥٠١٢-٥٠٢٢. doi:10.1523/JNEUROSCI.3707-13.2014
١٢٦. هارجريف إس إل، ديفيدسون تي إل، تشنغ دبليو، كينزيغ كيه بي. الأنظمة الغذائية الغربية تُسبب تسربًا في الحاجز الدموي الدماغي وتُغير الاستراتيجيات المكانية لدى الفئران. علم الأعصاب السلوكي (٢٠١٦) ١٣٠ (١): ١٢٣-١٣٥. doi:10.1037/bne0000110
127. سميث كيه إل، هامر تي إيه، هولفيرشورن إل إيه. إدمان ألعاب الفيديو وعلاقته باضطرابات تعاطي المواد المخدرة. تقارير الإدمان الحالية (2015) 2 (4): 302-9. doi:10.1007/s40429-015-0075-6
128. وينشتاين، أ.م. إدمان ألعاب الكمبيوتر والفيديو - مقارنة بين مستخدمي الألعاب وغير المستخدمين. المجلة الأمريكية لإدمان المخدرات والكحول (2010) 36 (5): 268-76. doi:10.3109/00952990.2010.491879
١٢٩. كاتسيري ج، هاري ر، رافاجا ن، نومينما ل. أهمية الخصم: ارتفاع استجابات المكافأة في التصوير بالرنين المغناطيسي الوظيفي عند الفوز على خصم بشري مقابل خصم حاسوبي أثناء لعب ألعاب الفيديو التفاعلية. قشرة المخ (٢٠١٣) ٢٣ (١٢): ٢٨٢٩-٣٩. doi:10.1093/cercor/bhs259
١٣٠. كاتسيري ج، هاري ر، رافاجا ن، نومينما ل. مجرد مشاهدة اللعبة لا يكفي: استجابات التصوير بالرنين المغناطيسي الوظيفي للدماغ المخططي للمكافأة الناتجة عن النجاحات والإخفاقات في لعبة فيديو أثناء اللعب النشط واللعب غير المباشر. فرونت هيوم نيوروساينس (٢٠١٣) ٧ : ٢٧٨. doi:10.3389/fnhum.2013.00278
١٣١. إريكسون كي آي، بوت دبليو آر، باساك سي، نيدر إم بي، براكاش آر إس، فوس إم دبليو، وآخرون. حجم الجسم المخطط يتنبأ بمستوى اكتساب مهارات ألعاب الفيديو. قشرة المخ (٢٠١٠) ٢٠ : ٢٥٢٢-٣٠. doi:10.1093/cercor/bhp293
١٣٢. ويست جي إل، دريسديل بي إل، كونيشي كيه، جاكسون جيه، جوليكور بي، بوهبوت في دي. يرتبط لعب ألعاب الفيديو الحركية بشكل اعتيادي باستراتيجيات الملاحة المعتمدة على النواة المذنبة. وقائع الجمعية الملكية ب (٢٠١٥) ٢٨٢ (١٨٠٨). doi:10.1098/rspb.2014.2952
133. ليو إس، شاد دي جيه، كوشبيل إم إس، راب إم إيه، هاينز إيه. الموسيقى وألعاب الفيديو أثناء فترات الراحة: تأثير اتخاذ القرارات الاعتيادية مقابل اتخاذ القرارات الموجهة نحو الهدف. ورقة بحثية قُدِّمت في الاجتماع السنوي الخامس والأربعين لجمعية علم الأعصاب . شيكاغو، إلينوي: جمعية علم الأعصاب (2015).
١٣٤. دي فونسيكا، إف آر، كاريرا، إم آر إيه، نافارو، إم، كوب، جي إف، فايس، إف. تنشيط عامل إطلاق الكورتيكوتروبين في الجهاز الحوفي أثناء انسحاب القنب. مجلة ساينس (١٩٩٧) ٢٧٦ (٥٣٢١): ٢٠٥٠-٢٠٥٤. doi:10.1126/science.276.5321.2050
١٣٥. كورنيليوس جيه آر، تشونغ تي، مارتن سي، وود دي إس، كلارك دي بي. أعراض انسحاب القنب شائعة بين المراهقين الذين يسعون للعلاج من إدمان القنب والاكتئاب الشديد، وترتبط بانتكاس سريع للإدمان. سلوك الإدمان (٢٠٠٨) ٣٣ (١١): ١٥٠٠-١٥٠٠٥. doi:10.1016/j.addbeh.2008.02.001
١٣٦. غرين إم سي، كيلي جيه إف. انتشار أعراض انسحاب القنب وتأثيرها على استجابة المراهقين للعلاج ونتائجه: دراسة استباقية لمدة ١٢ شهرًا. مجلة طب الإدمان (٢٠١٤) ٨ : ٣٥٩-٣٦٧. doi:10.1097/ADM.0000000000000064
١٣٧. فاغنر، ف. أ.، وأنتوني، ج. س. من أول استخدام للمخدرات إلى الإدمان عليها؛ فترات النمو التي تنطوي على خطر الإدمان على الماريجوانا والكوكايين والكحول. علم الأدوية النفسية العصبية (٢٠٠٢) ٢٦ : ٤٧٩-٤٨٨. doi:10.1016/S0893-133X(01)00367-0
138. غودمان ج، باكارد إم جي. تأثير الكانابينويدات على عمليات التعلم والذاكرة في الجسم المخطط الظهري. علم الأحياء العصبي للتعلم والذاكرة (2015) 125 : 1-14. doi:10.1016/j.nlm.2015.06.008
139. رويدا-أوروزكو بي إي، سوريا-غوميز إي، مونتيس-رودريغيز سي جيه، مارتينيز-فارجاس إم، غاليسيا أو، نافارو إل، وآخرون. وظيفة محتملة لـ endocannabinoids في اختيار استراتيجية الملاحة بواسطة الفئران. علم الأدوية النفسية (2008) 198 (4):565–76. دوى:10.1007/s00213-007-0911-z
١٤٠. غودمان ج، باكارد إم جي. حقن ناهض مستقبلات الكانابينويد WIN 55,212-2 في الجسم المخطط الظهري الجانبي المحيطي وداخله يُضعف توطيد ذاكرة الاستجابة للمثير. علم الأعصاب (٢٠١٤) ٢٧٤ : ١٢٨-١٣٧. doi:10.1016/j.neuroscience.2014.05.007
١٤١. نازارو سي، غريكو بي، سيروفيتش إم، باكستر بي، روبينو تي، تروسيل إم، وآخرون. تعديل قنوات SK يُنقذ اللدونة المخططية والتحكم في العادة في تحمل الكانابينويد. نات نيوروساينس (٢٠١٢) ١٥ : ٢٨٤-٢٩٣. doi:10.1038/nn.3022
١٤٢. أميس إس إل، غرينارد جيه إل، ستايسي إيه دبليو، شياو إل، هي كيو، وونغ إس دبليو، وآخرون. التصوير الوظيفي للارتباطات الضمنية للماريجوانا أثناء أداء اختبار الارتباط الضمني (IAT). بحوث الدماغ السلوكية (٢٠١٣) ٢٥٦ : ٤٩٤-٥٠٢. doi:10.1016/j.bbr.2013.09.013
143. ريديش، أ.د.، جنسن، س.، جونسون، أ. إطار موحد للإدمان: مواطن الضعف في عملية اتخاذ القرار. مجلة العلوم السلوكية والدماغية (2008) 31 (04): 415-37. doi:10.1017/S0140525X0800472X
144. بريفرز د، بشارة أ، كليرمانز أ، نويل إكس. مهمة المقامرة في ولاية أيوا (IGT): بعد عشرين عامًا - اضطراب المقامرة ومهمة المقامرة في ولاية أيوا. فرونت سايكولوجي (2013) 4 : 665. doi:10.3389/fpsyg.2013.00665
145. كوب، جي إف، ولو موال، إم. الآليات العصبية البيولوجية لعمليات التحفيز المتضادة في الإدمان. معاملات الجمعية الملكية ب، العلوم البيولوجية (2008) 363 (1507): 3113-23. doi:10.1098/rstb.2008.0094
١٤٦. هايمان، إس. إي.، مالينكا، آر. سي.، نيستلر، إي. جيه. الآليات العصبية للإدمان: دور التعلم والذاكرة المرتبطين بالمكافأة. المجلة السنوية لعلم الأعصاب (٢٠٠٦) ٢٩ : ٥٦٥-٥٩٨. doi:10.1146/annurev.neuro.29.051605.113009
147. غودمان ج، باكارد م. نظام الذاكرة المُستَخدَم أثناء الاكتساب يُحدِّد فعالية بروتوكولات الإطفاء المختلفة. فرونت بيهيف نيوروساينس (2015) 9 : 314. doi:10.3389/fnbeh.2015.00314
148. بالينسيا، سي. أ.، وراغوزينو، م. إ. مساهمة مستقبلات NMDA في الجسم المخطط الظهري الجانبي في تعلم الاستجابة الذاتية. علم الأعصاب السلوكي (2005) 119 (4): 953-60. doi:10.1037/0735-7044.119.4.953
149. Rueda-Orozco PE، Montes-Rodriguez CJ، Soria-Gomez E، Méndez-Díaz M، Prospéro-García O. ضعف نشاط endocannabinoids في المخطط الظهري الوحشي يؤخر انقراض السلوك في مهمة الذاكرة الإجرائية في الفئران. علم الأدوية العصبية (2008) 55 (1):55-62. دوى:10.1016/j.neuropharm.2008.04.013
الكلمات الرئيسية: الذاكرة ، إدمان المخدرات ، الحصين ، المخطط ، اللوزة ، الإجهاد ، القلق
المرجع: غودمان ج وباكارد إم جي (2016) أنظمة الذاكرة والدماغ المدمن. فرونت. الطب النفسي 7:24. doi: 10.3389/fpsyt.2016.00024
تم الاستلام: 01 December 2015؛ تم القبول: 11 February 2016؛
نشرت: شنومكس فبراير شنومكس
حرره:
فنسنت ديفيد ، المركز الوطني للبحوث العلمية (CNRS)، فرنسا
تمت مراجعته من قبل:
جاك ميتشوجامعة بوردو 1 ، فرنسا
روبرتو Ciccocioppoجامعة كاميرينو ، إيطاليا
حقوق النشر: © 2016 غودمان وباكارد. هذه مقالة متاحة للجميع بموجب شروط رخصة المشاع الإبداعي (CC BY) . يُسمح باستخدامها أو توزيعها أو إعادة إنتاجها في منتديات أخرى، شريطة الإشارة إلى المؤلف (المؤلفين) الأصلي (الأصليين) أو المرخص، وذكر النشر الأصلي في هذه المجلة، وفقًا للممارسات الأكاديمية المتعارف عليها. لا يُسمح بأي استخدام أو توزيع أو إعادة إنتاج لا يتوافق مع هذه الشروط.
*للتواصل: مارك ج. باكارد، [email protected]