التعليقات: كما ستكشف الدراسات اللاحقة أن DeltaFosB هو المفتاح الجزيئي الشائع لكل من إدمان المخدرات والسلوك. إنه عامل نسخ مما يعني أنه يؤثر على الجينات التي يتم تشغيلها أو إيقاف تشغيلها. كما هو مذكور في مكان آخر ، فإن العقاقير التي تسبب الإدمان تختطف الآليات العادية فقط. هذا هو السبب في أنه من السخف الإشارة إلى أن الإدمان السلوكي لا يمكن أن يوجد.
Proc Natl Acad Sci US A. 2001 September 25؛ 98 (20): 11042 – 11046.
doi: 10.1073 / pnas.191352698.
Eric J. Nestler *، Michel Barrot، and David W. Self
قسم الطب النفسي ومركز العلوم العصبية الأساسية ، جامعة تكساس المركز الطبي الجنوبي الغربي ، 5323 Harry Hines Boulevard، Dallas، TX 75390-9070
الملخص
يشير استمرار بعض الاضطرابات السلوكية التي تميز إدمان المخدرات إلى احتمال تورط تنظيم التعبير الجيني العصبي في عملية تسبب المخدرات في حالة الإدمان. وتشير أدلة متزايدة إلى أن عامل النسخ ΔFosB يمثل إحدى الآليات التي تُحدث بها المخدرات تغييرات مستقرة نسبيًا في الدماغ، مما يُسهم في ظهور أعراض الإدمان. يتراكم ΔFosB ، وهو أحد أفراد عائلة عوامل النسخ Fos ، داخل مجموعة فرعية من الخلايا العصبية في النواة المتكئة والجسم المخطط الظهري (مناطق دماغية مهمة للإدمان) بعد تعاطي أنواع عديدة من المخدرات بشكل متكرر. ويحدث تراكم مماثل لـ ΔFosB بعد الجري القهري، مما يوحي بأن ΔFosB قد يتراكم استجابةً لأنواع عديدة من السلوكيات القهرية . والجدير بالذكر أن ΔFosB يبقى في الخلايا العصبية لفترات طويلة نسبيًا نظرًا لاستقراره الاستثنائي. لذا، يُمثل ΔFosB آلية جزيئية قادرة على بدء تغييرات في التعبير الجيني والحفاظ عليها، وهي تغييرات تستمر لفترة طويلة بعد التوقف عن تعاطي المخدرات . تُقدم الدراسات التي أُجريت على فئران مُعدلة وراثيًا قابلة للتحفيز، والتي تُفرط في التعبير عن ΔFosB أو مُثبط سائد سلبي لهذا البروتين، دليلًا مباشرًا على أن ΔFosB يُسبب زيادة في الحساسية للتأثيرات السلوكية للمخدرات، وربما زيادة في سلوك البحث عن المخدرات. يدعم هذا العمل الرأي القائل بأن ΔFosB يعمل كنوع من "المفتاح الجزيئي" المُستدام الذي يُحوّل تدريجيًا الاستجابات الحادة للمخدرات إلى تكيفات مستقرة نسبيًا تُساهم في اللدونة العصبية والسلوكية طويلة الأمد التي تُشكل أساس الإدمان.
وتركز أبحاث الإدمان على فهم الطرق المعقدة التي تؤدي بها تعاطي المخدرات إلى تغيير الدماغ لتسبب تشوهات سلوكية تميز الإدمان. إن أحد التحديات الحاسمة في هذا المجال هو تحديد التغيرات المستقرة نسبيًا في المخدرات في الدماغ لمراعاة تلك التشوهات السلوكية التي تدوم لفترة طويلة. على سبيل المثال ، قد يكون المدمن البشري في خطر متزايد للانتكاس حتى بعد سنوات من الامتناع.
أدى استقرار هذه الاضطرابات السلوكية إلى اقتراح أنها قد تكون ناتجة، جزئيًا على الأقل، عن تغيرات في التعبير الجيني (1-3). ووفقًا لهذا الرأي، فإن التعرض المتكرر لمادة مخدرة يُخلّ باستمرار بنقل الإشارات في نقاط عصبية معينة في الدماغ حساسة لهذه المادة. وتُرسل هذه الاضطرابات إشارات عبر سلسلة من الإشارات الخلوية إلى النواة، حيث تبدأ أولًا ثم تُحافظ على تغيرات في التعبير عن جينات محددة. ومن الآليات الأساسية التي تؤثر من خلالها مسارات نقل الإشارة على التعبير الجيني تنظيم عوامل النسخ، وهي بروتينات ترتبط بالمناطق التنظيمية للجينات وتُعدّل نسخها.
لذا كان أحد أهداف أبحاث الإدمان هو تحديد عوامل النسخ التي تتغير في مناطق الدماغ المتورطة في الإدمان بعد تعاطي المخدرات المزمنة للإساءة. تم تحديد العديد من عوامل النسخ على مدار العقد الماضي (1 – 6). تركز هذه المراجعة على عامل نسخ معين يسمى ΔFosB.
تحريض ΔFosB من تعاطي المخدرات
ΔFosB ، المشفرة بواسطة جين fosB ، هو عضو في عائلة Fos لعوامل النسخ ، والتي تشمل أيضًا c-Fos و FosB و Fra1 و Fra2 (7). هذه البروتينات عائلة فوس heterodimerize مع بروتينات عائلة يونيو (ج يونيو ، جون ، أو JunD) لتشكيل عوامل النسخ النشطة AP-1 (البروتين المنشط- 1) التي تربط المواقع AP-1 (تسلسل الآراء: TGAC / GTCA) موجودة في المروجين من جينات معينة لتنظيم النسخ الخاصة بهم.
يتم تحفيز هذه البروتينات عائلة فوس بسرعة وعابرة في مناطق معينة من الدماغ بعد إدارة الحادة من العديد من المخدرات من سوء المعاملة (الشكل. 1) (8 - 11). المناطق البارزة هي النواة المتكئة والمخطط الظهري ، والتي تعتبر وسطاء مهمين للاستجابات السلوكية للأدوية ، على وجه الخصوص ، تأثيراتها الحافزة والمفعّلة (12 ، 13). هذه البروتينات العودة إلى مستويات القاعدية في غضون ساعات من إدارة المخدرات.
الشكل 1
مخطط يوضح التراكم التدريجي لبروتين ΔFosB مقابل التحفيز السريع والعابر لبروتينات أخرى من عائلة Fos استجابةً لتعاطي المخدرات. (أ) يوضح التصوير الإشعاعي الذاتي التحفيز التفاضلي لهذه البروتينات المختلفة عن طريق التحفيز الحاد (1-2 ساعة بعد التعرض لمادة مخدرة واحدة) مقابل التحفيز المزمن (يوم واحد بعد التعرض المتكرر للمادة المخدرة). (ب) يتم تحفيز عدة موجات من البروتينات الشبيهة بـ Fos [المؤلفة من c-Fos (أشكال متماثلة من 52 إلى 58 كيلو دالتون)، وFosB (أشكال متماثلة من 46 إلى 50 كيلو دالتون)، وΔFosB (شكل متماثل 33 كيلو دالتون)، وFra1 أو Fra2 (40 كيلو دالتون)] في النواة المتكئة وخلايا عصبية في الجسم المخطط الظهري عن طريق الإعطاء الحاد لمادة مخدرة. كما يتم تحفيز الأشكال المتماثلة المعدلة كيميائيًا حيويًا من ΔFosB (35-37 كيلو دالتون). تُحفَّز هذه البروتينات أيضًا (وإن كانت بمستويات منخفضة) بعد تناول جرعة حادة من الدواء، لكنها تبقى في الدماغ لفترات طويلة نظرًا لثباتها. (ج) مع تكرار تناول الدواء (مثلًا، مرتين يوميًا)، يُحفِّز كل منبه حاد مستوى منخفضًا من نظائر ΔFosB المستقرة، وهو ما يُشير إليه الخط السفلي المتداخل الذي يُبيّن ΔFosB المُحفَّز بكل منبه حاد. والنتيجة هي زيادة تدريجية في المستويات الكلية لـ ΔFosB مع تكرار المنبهات خلال فترة العلاج المزمن، وهو ما يُشير إليه الخط المتدرج المتزايد في الرسم البياني.
تُلاحظ استجابات شديدة التباين بعد تعاطي المخدرات المزمن (الشكل 1) . تتراكم الأشكال المُعدّلة بيوكيميائيًا من ΔFosB (الكتلة الجزيئية 35-37 كيلو دالتون) في نفس مناطق الدماغ بعد التعرض المتكرر للمخدر، بينما تُظهر جميع أفراد عائلة Fos الأخرى تحملاً (أي انخفاضًا في التحفيز مقارنةً بالتعرض الأولي للمخدر). وقد لوحظ هذا التراكم لـ ΔFosB مع الكوكايين والمورفين والأمفيتامين والكحول والنيكوتين والفينسيكليدين (11، 14-18). وتشير بعض الأدلة إلى أن هذا التحفيز انتقائي لمجموعة فرعية من الخلايا العصبية الشوكية المتوسطة التي تحتوي على الدينورفين/المادة P، والموجودة في هذه المناطق الدماغية (15، 17)، على الرغم من الحاجة إلى مزيد من الدراسات لتأكيد ذلك بشكل قاطع. تتحد نظائر ΔFosB التي يتراوح وزنها الجزيئي بين 35 و37 كيلو دالتون بشكل أساسي مع JunD لتكوين مُركب AP-1 نشط وطويل الأمد داخل هذه المناطق الدماغية (19، 20). تتراكم هذه النظائر مع التعرض المزمن للدواء نظرًا لعمر النصف الطويل للغاية لها (21)، وبالتالي تبقى في الخلايا العصبية لعدة أسابيع على الأقل بعد التوقف عن تناول الدواء. ومن المثير للاهتمام أن هذه النظائر هي نواتج مستقرة للغاية لجين مُبكر فوري (fosB). يوفر استقرار نظائر ΔFosB آلية جزيئية جديدة تُفسر استمرار التغيرات في التعبير الجيني الناتجة عن الدواء على الرغم من فترات التوقف الطويلة نسبيًا عن تناوله.
على الرغم من أن النواة المتكئة تلعب دوراً حاسماً في التأثيرات المكافئة لعقاقير الإساءة ، إلا أنه يعتقد أنها تعمل بشكل طبيعي من خلال تنظيم الاستجابات للمعززات الطبيعية ، مثل الطعام والشراب والجنس والتفاعلات الاجتماعية (12 و 13). ونتيجة لذلك ، هناك اهتمام كبير بالدور المحتمل لهذه المنطقة الدماغية في السلوكيات القهرية الأخرى (مثل الإفراط في تناول الطعام ، والمقامرة ، وممارسة الرياضة ، وما إلى ذلك). ولهذا السبب ، فحصنا ما إذا كان ΔFosB منظمًا في نموذج حيواني للركض القهري. في الواقع ، فإن المستحثات السينية 35- إلى 37-kDa من ΔFosB يتم تحفيزها بشكل انتقائي داخل النواة المتكئة في الفئران التي تظهر سلوك الجري القهري.
الهوية البيوكيميائية للأشكال المستطيلة ΔFosB
كما ذكرنا أعلاه ، فإن الأشكال الإسوية ΔFosB التي تتراكم بعد المعالجة المزمنة لدواء من تعاطي أو الجري القهري تظهر كتلة جزيئية من 35-37 kDa. يمكن تمييزها عن الشكل 33-kDa isoform of ΔFosB الذي يحدث بسرعة ولكن بشكل عابر بعد التعرض لعقار واحد (الشكل 1) (14 ، 19 ، 22). تشير الأدلة الحالية إلى أن 33-kDa isoform هو الشكل الأصلي للبروتين ، والذي يتم تغييره ليشكل منتجات 35- إلى 37-kDa الأكثر استقرارًا (19 و 21). ومع ذلك ، فإن طبيعة التعديل البيوكيميائي الذي يحول الشكل غير المستقر 33-kDa isoform إلى الـ 35- إلى 37-kDa isoforms ظل غامضا. لقد تم التكهن بأن الفسفرة قد تكون مسؤولة (11). على سبيل المثال ، يتم توهين الحث لـ ΔFosB في الفئران التي تفتقر إلى DARPP-32 ، وهو بروتين مضاف إلى المخصب (23 ، 24). نظرًا لأن DARPP-32 ينظم النشاط التحفيزي للبروتين phosphatase-1 وبروتين kinase A (25 ، 26) ، فإن الحاجة إلى هذا البروتين للتراكم العادي للأشكال الإسوية المستقرة ΔFosB تشير إلى دور محتمل للفسفرة في توليد هذه المنتجات المستقرة.
دور ΔFosB في اللدونة السلوكية إلى تعاطي المخدرات
لقد استُمدّ فهم دور ΔFosB في إدمان المخدرات بشكل كبير من دراسة الفئران المعدلة وراثيًا، حيث يمكن تحفيز ΔFosB بشكل انتقائي في النواة المتكئة ومناطق أخرى من الجسم المخطط لدى الحيوانات البالغة (27، 28). ومن المهم ذكره أن هذه الفئران تُظهر فرطًا في التعبير عن ΔFosB بشكل انتقائي في الخلايا العصبية الشوكية المتوسطة المحتوية على الدينورفين/المادة P، حيث يُعتقد أن المخدرات تحفز إنتاج هذا البروتين. يلخص الجدول 1 النمط الظاهري السلوكي للفئران التي تُظهر فرطًا في التعبير عن ΔFosB، والذي يُشابه في نواحٍ عديدة سلوك الحيوانات بعد التعرض المزمن للمخدرات. تُظهر هذه الفئران استجابات حركية مُعززة للكوكايين بعد تعاطيه الحاد والمزمن (28). كما تُظهر هذه الحيوانات حساسية مُعززة للتأثيرات المُحفزة للكوكايين والمورفين في اختبارات التكييف المكاني (11، 28)، وتُقدم جرعات أقل من الكوكايين على نفسها مقارنةً بأقرانها من نفس الفئة العمرية الذين لا يُفرطون في التعبير عن ΔFosB.‡ في المقابل، تُظهر هذه الحيوانات حساسية حركية طبيعية مُشروطة للكوكايين، وتعلمًا مكانيًا طبيعيًا في متاهة موريس المائية (28). تُشير هذه البيانات إلى أن ΔFosB يزيد من حساسية الحيوان للكوكايين، وربما لمخدرات أخرى، وقد يُمثل آليةً للحساسية المُطولة نسبيًا لهذه المخدرات.
 المخطط
| زيادة تنشيط الحركي استجابةً لإدارة الكوكايين الحادة والمتكررة. |
| زيادة الردود المجزية على الكوكايين والمورفين في فحوصات تكييف الهواء. |
| زيادة الإدارة الذاتية للجرعات المنخفضة من الكوكايين. |
| زيادة الدوافع للكوكايين في فحوصات النسبة التدريجية. |
| زيادة استجابات مزيل القلق على الكحول. |
| زيادة سلوك الجري القهري. |
استنادًا إلى البيانات الواردة في المراجع 28 و 29 . †‡§¶
اللدونة السلوكية بوساطة ΔFosB في النواة المتكئة الظهرية النواة
بالإضافة إلى ذلك، توجد أدلة أولية تشير إلى أن تأثيرات ΔFosB قد تتجاوز تنظيم حساسية المخدرات بحد ذاته لتشمل سلوكيات أكثر تعقيدًا مرتبطة بعملية الإدمان. فالفئران التي تُظهر تعبيرًا عن ΔFosB تبذل جهدًا أكبر في تعاطي الكوكايين ذاتيًا في اختبارات التعاطي الذاتي التدريجي، مما يوحي بأن ΔFosB قد يزيد من حساسية الحيوانات للخصائص التحفيزية للكوكايين، وبالتالي يؤدي إلى ميلها للانتكاس بعد التوقف عن تعاطي المخدرات .‡ كما تُظهر الفئران التي تُظهر تعبيرًا عن ΔFosB تأثيرات مُضادة للقلق مُعززة للكحول،§ وهو نمط ظاهري يرتبط بزيادة استهلاك الكحول لدى البشر. تشير هذه النتائج الأولية مجتمعةً إلى أن ΔFosB، بالإضافة إلى زيادة الحساسية للمخدرات، يُحدث تغييرات نوعية في السلوك تُعزز سلوك البحث عن المخدرات. وبالتالي، قد يعمل ΔFosB كـ"مفتاح جزيئي" مستدام يُساعد في بدء جوانب حاسمة من حالة الإدمان والحفاظ عليها. أحد الأسئلة المهمة قيد التحقيق الحالي هو ما إذا كان تراكم ΔFosB أثناء التعرض للأدوية يعزز سلوك البحث عن المخدرات بعد فترات انسحاب طويلة، حتى بعد أن تعود مستويات ΔFosB إلى طبيعتها (انظر أدناه).
تُظهر الفئران البالغة التي تُفرط في التعبير عن ΔFosB بشكل انتقائي داخل النواة المتكئة والجسم المخطط الظهري أيضًا سلوكًا قهريًا أكبر في الجري مقارنةً بأقرانها من نفس الفئة العمرية.† تُثير هذه الملاحظات احتمالًا مثيرًا للاهتمام مفاده أن تراكم ΔFosB داخل هذه الخلايا العصبية يؤدي دورًا أكثر عمومية في تكوين ذكريات العادات والسلوكيات القهرية والحفاظ عليها، ربما عن طريق تعزيز فعالية الدوائر العصبية التي تعمل فيها تلك الخلايا العصبية.
يتراكم بروتين ΔFosB في مناطق دماغية محددة خارج النواة المتكئة والجسم المخطط الظهري بعد التعرض المزمن للكوكايين. ومن أبرز هذه المناطق اللوزة الدماغية والقشرة الجبهية الإنسية (15). يتمثل أحد الأهداف الرئيسية للبحوث الحالية في فهم مساهمة تحفيز بروتين ΔFosB في هذه المناطق في ظهور أعراض الإدمان.
كشفت الأعمال السابقة على الفئران بالضربة القاضية fosB أن هذه الحيوانات تفشل في تطوير الحساسية للتأثيرات الحركية للكوكايين ، وهو ما يتوافق مع النتائج التي توصلت إليها الفئران التي تعاني من إفراط في التعبير عن FosB المذكورة أعلاه (22). ومع ذلك ، أظهرت طفرات fosB حساسية معززة للتأثيرات الحادة للكوكايين ، وهو ما يتعارض مع هذه النتائج الأخرى. ومع ذلك ، فإن تفسير النتائج باستخدام طفرات fosB معقد بسبب حقيقة أن هذه الحيوانات لا تفتقر إلى ΔFosB فحسب ، بل تفتقر إلى FosB كامل الطول أيضًا. علاوة على ذلك ، فإن الطفرات تفتقر إلى البروتينات في جميع أنحاء الدماغ ومن المراحل الأولى من التطور. في الواقع ، يدعم العمل الأكثر حداثة استنتاجات من ingFosB overexpressing الفئران: الإفراط في التعبير المحرض عن متحولة مقطوعة من c-Jun ، والتي تعمل كمضاد سلبي مهيمن لـ ΔFosB ، بشكل انتقائي في النواة المتكئة ويظهر المخطط الظهري حساسية منخفضة للتأثيرات المجزية للكوكايين . تؤكد هذه النتائج على الحذر الذي يجب استخدامه في تفسير النتائج من الفئران ذات الطفرات التأسيسية وتوضح أهمية الفئران ذات الطفرات المحفزة والخاصة بنوع الخلية في دراسات اللدونة في دماغ البالغين.
الهدف الجينات ل ΔFosB
بما أن ΔFosB عامل نسخ، فمن المفترض أن هذا البروتين يُحدث مرونة سلوكية من خلال تغييرات في التعبير عن جينات أخرى. يُنتَج ΔFosB عن طريق التضفير البديل لجين fosB، ويفتقر إلى جزء من نطاق التنشيط الطرفي C الموجود في FosB كامل الطول. ونتيجةً لذلك، اقتُرح في البداية أن ΔFosB يعمل كمثبط نسخ (29). مع ذلك، أظهرت الدراسات في مزارع الخلايا بوضوح أن ΔFosB يمكنه إما تحفيز أو تثبيط النسخ بوساطة AP-1 اعتمادًا على موقع AP-1 المحدد المستخدم (21، 29-31). يُمارس FosB كامل الطول نفس تأثيرات ΔFosB على أجزاء معينة من المحفز، ولكن بتأثيرات مختلفة على أجزاء أخرى. هناك حاجة إلى مزيد من البحث لفهم الآليات الكامنة وراء هذه التأثيرات المتنوعة لـ ΔFosB وFosB.
استخدمت مجموعتنا طريقتين لتحديد الجينات المستهدفة لـ ΔFosB. واحد هو نهج الجينات المرشح. لقد اعتبرنا في البداية مستقبلات الغلوتامات α-amino-3-hydroxy-5-methyl-4-isoxazolepropionic (AMPA) أهدافًا مفترضة ، نظرًا للدور المهم لانتقال الجلوتامات في النواة المتكئة. يشير العمل حتى الآن إلى أن وحدة فرعية معينة لمستقبلات الغلوتامات AMPA ، GluR2 ، قد تكون هدفًا حقيقيًا لـ ΔFosB (الشكل 2). يتم زيادة تعبير GluR2 ، ولكن ليس التعبير عن الوحدات الفرعية لمستقبلات AMPA الأخرى ، في النواة المتكئة (ولكن ليس المخطط الظهري) عند الإفراط في التعبير عن ΔFosB (28) ، ويقلل التعبير عن متحولة سلبية سائدة من قدرة الكوكايين على تحفيز البروتين. بالإضافة إلى ذلك ، يحتوي مروج الجين GluR2 على موقع AP-1 إجماعي يربط FosB (28). يزيد التعبير المفرط عن GluR2 في النواة المتكئة ، عن طريق استخدام نقل الجينات بوساطة الفيروس ، من حساسية الحيوان للتأثيرات المجزية للكوكايين ، وبالتالي محاكاة جزء من النمط الظاهري المرئي في الفئران التي تعبر عن ΔFosB (28). يمكن أن يفسر تحريض GluR2 انخفاض الحساسية الكهربية للنواة التي تتأقلم الخلايا العصبية مع منبهات مستقبلات AMPA بعد تناول الكوكايين المزمن (32) ، لأن مستقبلات AMPA التي تحتوي على GluR2 تظهر انخفاض الموصلية الكلية وتقليل نفاذية Ca2 +. قد يؤدي انخفاض استجابة هذه الخلايا العصبية للمدخلات المثيرة إلى تعزيز الاستجابات تجاه تعاطي المخدرات. ومع ذلك ، فإن الطرق التي تنظم بها إشارات الدوبامين والغلوتامات في النواة المتكئة سلوك الإدمان تظل غير معروفة ؛ سيتطلب هذا مستوى من فهم الدائرة العصبية ، وهو ما لم يتوفر بعد.
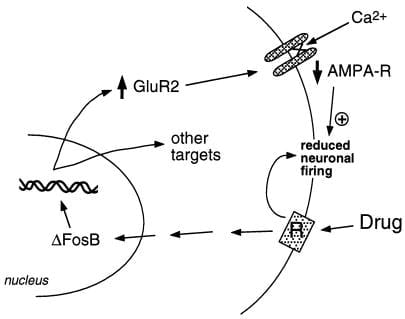
الشكل 2
تُعدّ الوحدة الفرعية GluR2 لمستقبلات الغلوتامات AMPA هدفًا محتملاً لـ ΔFosB. يوضح الشكل كيف يُمكن لتحفيز GluR2 بواسطة ΔFosB أن يُغيّر الاستجابة الفيزيولوجية لخلايا النواة المتكئة، مما يؤدي إلى استجابات مُحسّسة للمخدرات. وفقًا لهذا المخطط، تُحدث المخدرات تأثيراتها المُعززة الحادة عبر تثبيط خلايا النواة المتكئة. مع التعرض المُتكرر، تُحفز هذه المخدرات ΔFosB، الذي يُنظم العديد من الجينات المُستهدفة، بما في ذلك GluR2. هذا يزيد من نسبة مستقبلات AMPA (AMPA-R) على خلايا النواة المتكئة التي تحتوي على الوحدة الفرعية GluR2، مما يُؤدي إلى انخفاض تيار AMPA الكلي وتيار Ca2+. قد يجعل هذا الانخفاض في الاستثارة الخلايا العصبية أكثر حساسية للتأثيرات التثبيطية الحادة للمخدرات، وبالتالي لتأثيراتها المُعززة.
يُعدّ الجين المُشفّر للدينورفين هدفًا محتملاً آخر لـ ΔFosB . وكما ذُكر سابقًا، يُعبَّر عن الدينورفين في مجموعة فرعية من الخلايا العصبية الشوكية المتوسطة في النواة المتكئة التي تُظهر تحفيزًا لـ ΔFosB . ويبدو أن الدينورفين يعمل ضمن حلقة تغذية راجعة بين الخلايا: إذ يُثبّط إطلاقه الخلايا العصبية الدوبامينية التي تُعصّب الخلايا العصبية الشوكية المتوسطة، عبر مستقبلات الأفيون κ الموجودة على النهايات العصبية الدوبامينية في النواة المتكئة، وكذلك على أجسام الخلايا والتغصنات في المنطقة السقيفية البطنية (الشكل 3) (33-35). وتتفق هذه الفكرة مع قدرة مُنشِّط مستقبلات κ، عند إعطائه في أيٍّ من هاتين المنطقتين الدماغيتين، على تقليل تأثير الدواء (35).
أشارت دراسات حديثة إلى أن ΔFosB يقلل من التعبير عن الدينورفين، مما قد يساهم في تعزيز آليات المكافأة التي تُلاحظ عند تحفيز ΔFosB. ومن المثير للاهتمام أن عامل نسخ آخر مُنظَّم دوائيًا، وهو CREB (بروتين ربط عنصر استجابة cAMP) (2، 3)، يُحدث تأثيرًا معاكسًا: فهو يحفز التعبير عن الدينورفين في النواة المتكئة ويقلل من الخصائص المُكافئة للكوكايين والمورفين (4).
لأن تنشيط CREB الناتج عن المخدرات يتلاشى بسرعة بعد تناول الدواء، فإن هذا التنظيم المتبادل للدينورفين بواسطة CREB و ΔFosB يمكن أن يفسر التغيرات السلوكية المتبادلة التي تحدث خلال المراحل المبكرة والمتأخرة من الانسحاب، حيث تسود الأعراض العاطفية السلبية وانخفاض حساسية المخدرات خلال المراحل المبكرة من الانسحاب، وتسود الحساسية للتأثيرات التحفيزية والمحفزة للأدوية في نقاط زمنية لاحقة.
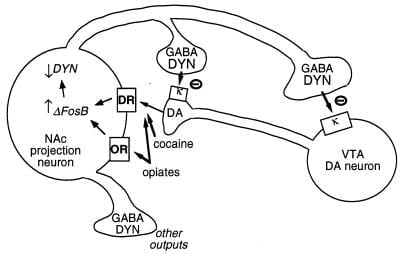
الشكل 3
يُعد الدينورفين هدفًا محتملاً لـ ΔFosB. يظهر في الشكل عصبون دوباميني (DA) في منطقة السقيفية البطنية (VTA) يُعصّب نوعًا من عصبونات الإسقاط الغاباوية في النواة المتكئة (NAc) التي تُعبّر عن الدينورفين (DYN). يعمل الدينورفين كآلية تغذية راجعة في هذه الدائرة العصبية: إذ يُفرز الدينورفين من نهايات عصبونات النواة المتكئة، ويعمل على مستقبلات الأفيون كابا الموجودة على النهايات العصبية وأجسام عصبونات الدوبامين لتثبيط وظيفتها. قد يُؤدي ΔFosB ، من خلال تثبيط التعبير عن الدينورفين، إلى خفض تنظيم حلقة التغذية الراجعة هذه وتعزيز الخصائص المُحفزة للإدمان. لم يُظهر الشكل التأثير المُتبادل لـ CREB على هذا النظام: إذ يُعزز CREB التعبير عن الدينورفين، وبالتالي يُضعف الخصائص المُحفزة للإدمان (4). GABA: حمض غاما-أمينوبيوتيريك؛ DR: مستقبل الدوبامين. أو، مستقبلات الأفيون.
الطريقة الثانية المستخدمة لتحديد الجينات المستهدفة لـ ΔFosB تتضمن تحليل ميكروأري للحمض النووي. يزيد التعبير المفرط المحرض عن ΔFosB أو يقلل من التعبير عن العديد من الجينات في النواة المتكئة (36). على الرغم من أن هناك حاجة الآن إلى عمل كبير للتحقق من صحة كل من هذه الجينات كأهداف فسيولوجية لـ ΔFosB وفهم مساهمتها في النمط الظاهري للإدمان ، يبدو أن أحد الأهداف المهمة هو Cdk5 (كيناز -5 المعتمد على السيكلين). وهكذا ، تم تحديد Cdk5 في البداية على أنه ΔFOSB منظم باستخدام المصفوفات الدقيقة ، وثبت لاحقًا أنه يتم تحفيزها في النواة المتكئة والمخطط الظهري بعد تناول الكوكايين المزمن (37). ΔFosB ينشط الجين cdk5 عبر موقع AP-1 موجود داخل مروج الجين (36). تدعم هذه البيانات معًا مخططًا يحفز فيه الكوكايين تعبير Cdk5 في مناطق الدماغ هذه عبر ΔFosB. يبدو أن تحريض Cdk5 يغير إشارات الدوبامين على الأقل جزئيًا عن طريق زيادة الفسفرة لـ DARPP-32 (37) ، والتي يتم تحويلها من مثبط بروتين فوسفاتيز -1 إلى مثبط لبروتين كيناز أ عند الفسفرة بواسطة Cdk5 (26).
دور ΔFosB في الوساطة "الدائمة" اللدونة إلى تعاطي المخدرات
على الرغم من أن إشارة ΔFosB تدوم لفترة طويلة نسبيًا، إلا أنها ليست دائمة. إذ تتحلل ΔFosB تدريجيًا، ولا يمكن رصدها في الدماغ بعد شهر إلى شهرين من التوقف عن تعاطي المخدرات، حتى مع استمرار بعض الاضطرابات السلوكية لفترات أطول بكثير. لذلك، لا يبدو أن ΔFosB بحد ذاته قادر على التوسط في هذه الاضطرابات السلوكية شبه الدائمة. إن صعوبة إيجاد التكيفات الجزيئية الكامنة وراء التغيرات السلوكية شديدة الاستقرار المرتبطة بالإدمان تُشابه التحديات التي تواجه مجال التعلم والذاكرة. فعلى الرغم من وجود نماذج خلوية وجزيئية متطورة للتعلم والذاكرة، لم يتسنَّ حتى الآن تحديد تكيفات جزيئية وخلوية تدوم لفترة كافية لتفسير الذكريات السلوكية شديدة الاستقرار. في الواقع، تُعد ΔFosB أطول التكيفات المعروفة التي تحدث في دماغ البالغين، ليس فقط استجابةً لتعاطي المخدرات، بل لأي اضطراب آخر (لا ينطوي على آفات) أيضًا. وقد تطورت مقترحات في مجالي الإدمان والتعلم والذاكرة، لتفسير هذا التناقض.
من المحتمل أن تؤدي التغيرات العابرة في التعبير الجيني، كتلك التي تتوسطها عوامل النسخ ΔFosB أو غيرها (مثل CREB)، إلى تغيرات طويلة الأمد في مورفولوجيا الخلايا العصبية وبنية المشابك العصبية. فعلى سبيل المثال، تترافق زيادة كثافة الأشواك التغصنية (وخاصةً زيادة الأشواك ثنائية الرأس) مع زيادة فعالية المشابك الغلوتاماتية في الخلايا الهرمية للحصين أثناء التقوية طويلة الأمد (38-40)، وتوازي هذه الزيادة الحساسية السلوكية المتزايدة للكوكايين التي تتوسطها الخلايا العصبية الشوكية المتوسطة في النواة المتكئة (41). ولا يُعرف ما إذا كانت هذه التغيرات البنيوية طويلة الأمد بما يكفي لتفسير التغيرات المستقرة في السلوك، على الرغم من أن هذه التغيرات تستمر لمدة شهر على الأقل بعد التوقف عن تعاطي المخدرات. تشير الأدلة الحديثة إلى احتمال أن يكون ΔFosB، وما يحفزه من إنتاج Cdk5، أحد العوامل الوسيطة للتغيرات التي تُحدثها الأدوية في بنية المشابك العصبية في النواة المتكئة (الشكل 4).‡‡ وبالتالي، فإن حقن مثبط Cdk5 في النواة المتكئة يمنع قدرة التعرض المتكرر للكوكايين على زيادة كثافة الأشواك التغصنية في هذه المنطقة. ويتوافق هذا مع الرأي القائل بأن Cdk5، الموجود بكثرة في الدماغ، ينظم بنية الخلايا العصبية ونموها (انظر المراجع 36 و37). ومن الممكن، وإن لم يُثبت ذلك بعد، أن تستمر هذه التغيرات في مورفولوجيا الخلايا العصبية لفترة أطول من إشارة ΔFosB نفسها.
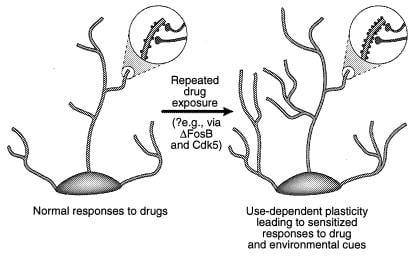
الشكل 4
تنظيم التركيب التغصني عن طريق تعاطي المخدرات. الظاهر هو توسع شجرة الخلايا العصبية المتغصنة بعد التعرض المزمن لعقار من تعاطي المخدرات ، كما لوحظ مع الكوكايين في النواة المتكئة وقشرة الفص الجبهي (41). تظهر مناطق التكبير زيادة في العمود الفقري الشجيري ، والذي يفترض أنه يحدث بالاقتران مع المحطات العصبية النشطة. يمكن التوسط في هذه الزيادة في كثافة العمود الفقري التغصني عبر ΔFosB وما يترتب على ذلك من تحريض Cdk5 (انظر النص). مثل هذه التغييرات في البنية التغصنية ، والتي تشبه تلك التي لوحظت في بعض نماذج التعلم (على سبيل المثال ، التقوية طويلة الأجل) ، يمكن أن تتوسط الاستجابات الحساسة طويلة الأمد للعقاقير التي تعاطي المخدرات أو الإشارات البيئية. [مستنسخة بإذن من المرجع. 3 (حقوق الطبع والنشر لعام 2001 ، مجلة Macmillian المحدودة)].
ثمة احتمال آخر يتمثل في أن التحفيز المؤقت لعامل نسخ (مثل ΔFosB أو CREB) يؤدي إلى تغييرات أكثر استدامة في التعبير الجيني من خلال تعديل الكروماتين . يُعتقد أن هذه العوامل، وغيرها الكثير، تُفعّل أو تُثبّط نسخ جين مستهدف عن طريق تعزيز أستلة أو إزالة أستلة الهستونات المجاورة للجين، على التوالي (42). على الرغم من أن أستلة وإزالة أستلة الهستونات قد تحدث بسرعة كبيرة ظاهريًا، فمن المحتمل أن يُحدث ΔFosB أو CREB تكيفات طويلة الأمد في الآلية الإنزيمية التي تتحكم في أستلة الهستونات. قد يُعزز ΔFosB أو CREB أيضًا تغييرات طويلة الأمد في التعبير الجيني من خلال تنظيم تعديلات أخرى للكروماتين (مثل مثيلة الحمض النووي أو الهستونات) التي ثبت تورطها في التغييرات الدائمة في نسخ الجينات التي تحدث أثناء النمو (انظر المراجع 42 و43). على الرغم من أن هذه الاحتمالات لا تزال مجرد تكهنات، إلا أنها قد توفر آلية تؤدي من خلالها التكيفات المؤقتة مع عقار الإدمان (أو أي اضطراب آخر) إلى عواقب سلوكية تستمر مدى الحياة بشكل أساسي.
مراجع حسابات
- ↵
- Nestler EJ ،
- الأمل BT ،
- Widnell KL
(1993) Neuron 11: 995 – 1006.
CrossRef Medline Web of Science
- ↵
- Berke JD ،
- هيمان سراج الدين
(2000) Neuron 25: 515 – 532.
CrossRef Medline Web of Science
- ↵
- Nestler EJ
(2001) Nat Rev Neurosci 2: 119 – 128.
CrossRef Medline Web of Science
- ↵
- كارليزون WA جونيور ،
- Thome J ،
- أولسون في جي ،
- Lane-Ladd SB ،
- Brodkin ES ،
- هيروي ن ،
- دومان RS ،
- نيف RL ،
- Nestler EJ
(1998) Science 282: 2272 – 2275.
-
- O'Donovan KJ ،
- Tourtellotte WG ،
- ميلبرانت جيه ،
- بارابان JM
(1999) Trends Neurosci 22: 167 – 173.
CrossRef Medline Web of Science
- ↵
- Mackler SA ،
- كوروتلا إل ،
- تشا XY ،
- كويبه إم جيه ،
- Fournier KM،
- باورز MS ،
- كاليفاس PW
(2000) J Neurosci 20: 6210 – 6217.
- ↵
- مورغان JI ،
- كوران تي
(1995) Trends Neurosci 18: 66 – 67.
CrossRef Medline Web of Science
- ↵
- يونغ ST،
- Porrino LJ ،
- يادارولا إم جي
(1991) Proc Natl Acad Sci USA 88: 1291 – 1295.
-
- Graybiel AM ،
- Moratalla R ،
- روبرتسون ها
(1990) Proc Natl Acad Sci USA 87: 6912 – 6916.
-
- الأمل ب ،
- كوسوفسكي ب ،
- هيمان سراج الدين ،
- Nestler EJ
(1992) Proc Natl Acad Sci USA 89: 5764 – 5768.
- ↵
- كيلز ميغابايت ،
- Nestler EJ
(2000) Curr Opin Neurol 13: 715 – 720.
CrossRef Medline Web of Science
- ↵
- Koob GF ،
- Sanna PP ،
- بلوم FE
(1998) Neuron 21: 467 – 476.
CrossRef Medline Web of Science
- ↵
- الحكيمة RA
(1998) اعتماد الكحول على المخدرات 51: 13 – 22.
CrossRef Medline Web of Science
- ↵
- الأمل BT ،
- نيه سعادة
- كيلز ميغابايت ،
- النفس دي دبليو ،
- ادارولا إم جي ،
- ناكابيبو واي ،
- دومان RS ،
- Nestler EJ
(1994) Neuron 13: 1235 – 1244.
CrossRef Medline Web of Science
- ↵
- نيه حاء ،
- الأمل BT ،
- كيلز م ،
- إدارولا م ،
- Nestler EJ
(1995) J Pharmacol Exp Ther 275: 1671 – 1680.
-
- نيه سعادة
- Nestler EJ
(1996) Mol Pharmacol 49: 636 – 645.
- ↵
- Moratalla R ،
- Elibol B ،
- Vallejo M ،
- Graybiel AM
(1996) Neuron 17: 147 – 156.
CrossRef Medline Web of Science
- ↵
- Pich EM ،
- Pagliusi SR ،
- تيساري م ،
- Talabot-Ayer D ،
- Hooft van Huijsduijnen R ،
- شياموليرا سي
(1997) Science 275: 83 – 86.
- ↵
- تشن JS ،
- نيه سعادة
- كيلز ميغابايت ،
- هيروي ن ،
- ناكابيبو واي ،
- الأمل BT ،
- Nestler EJ
(1995) Mol Pharmacol 48: 880 – 889.
- ↵
- هيروي ن ،
- بني ياء ،
- نعم ،
- سعود فو ،
- Vaidya VA ،
- دومان RS ،
- غرينبرغ الشرق الأوسط
- Nestler EJ
(1998) J Neurosci 18: 6952 – 6962.
- ↵
- تشن ياء ،
- كيلز ميغابايت ،
- الأمل BT ،
- ناكابيبو واي ،
- Nestler EJ
(1997) J Neurosci 17: 4933 – 4941.
- ↵
- هيروي ن ،
- بني ياء ،
- هيلي سي ،
- نعم ،
- غرينبرغ الشرق الأوسط
- Nestler EJ
(1997) Proc Natl Acad Sci USA 94: 10397 – 10402.
- ↵
- Fienberg AA،
- هيروي ن ،
- Mermelstein P ،
- سونغ و ج ،
- سنايدر جي إل ،
- نيشي A ،
- Cheramy A ،
- O'Callaghan JP ،
- ميلر دي ،
- كول DG ،
- وآخرون.
(1998) Science 281: 838 – 842.
- ↵
- هيروي ن ،
- فاينبيرغ أ ،
- هيلي سي ،
- Greengard P ،
- Nestler EJ
(1999) Eur J Neurosci 11: 1114 – 1118.
CrossRef Medline Web of Science
- ↵
- Greengard P ،
- ألين PB ،
- نايرن AC
(1999) Neuron 23: 435 – 447.
CrossRef Medline Web of Science
- ↵
- Bibb JA ،
- سنايدر جي إل ،
- نيشي A ،
- يان زد ،
- Meijer L ،
- Fienberg AA،
- تساي LH ،
- كوون واي تي ،
- جيراولت جا ،
- Czernik AJ ،
- وآخرون.
(1999) Nature (London) 402: 669 – 671.
- ↵
- تشن JS ،
- كيلز ميغابايت ،
- تسنغ جي كيو ،
- ساكاي إن ،
- Steffen C ،
- شوكيت PE ،
- Picciotto M ،
- دومان RS ،
- Nestler EJ
(1998) Mol Pharmacol 54: 495 – 503.
- ↵
- كيلز ميغابايت ،
- تشن JS ،
- كارليزون WA ،
- Whisler K ،
- غيلدن إل ،
- بيكمان AM ،
- Steffen C ،
- تشانغ يى جى
- ماروتي لام ،
- Self SW ،
- وآخرون.
(1999) Nature (London) 401: 272 – 276.
- ↵
- Dobrazanski P ،
- نوجوتشي تي ،
- Kovary K ،
- ريزو CA ،
- Lazo PS ،
- برافو ر
(1991) مول خلية بيول 11: 5470 - 5478.
-
- ناكابيبو واي ،
- ناثانز د
(1991) خلية 64: 751 – 759.
CrossRef Medline Web of Science
- ↵
- ين ي
- الحكمة RM ،
- Tratner I ،
- فيرما IM
(1991) Proc Natl Acad Sci USA 88: 5077 – 5081.
- ↵
- الأبيض FJ ،
- هو XT ،
- تشانغ اكس اف
- ذئب ME
(1995) J Pharmacol Exp Ther 273: 445 – 454.
- ↵
- هيمان سراج الدين
(1996) Neuron 16: 901 – 904.
CrossRef Medline Web of Science
-
- كريك ام جي
(1997) Pharmacol Biochem Behaven 57: 551 – 569.
CrossRef Medline Web of Science
- ↵
- Shippenberg TS ،
- اريد دبليو
(1997) Pharmacol Biochem Behaven 57: 449 – 455.
CrossRef Medline Web of Science
- ↵
- تشن JS ،
- تشانغ يى جى
- كيلز ميغابايت ،
- Steffen C ،
- Ang ES ،
- تسنغ لام ،
- Nestler EJ
(2000) J Neurosci 20: 8965 – 8971.
- ↵
- Bibb JA ،
- تشن JS ،
- تايلور الابن ،
- Svenningsson P ،
- نيشي A ،
- سنايدر جي إل ،
- يان زد ،
- ساغاوا زك ،
- نايرن AC ،
- Nestler EJ ،
- وآخرون.
(2001) Nature (London) 410: 376 – 380.
- ↵
- Luscher C ،
- نيكول RA ،
- RC مالينكا ،
- مولر د
(2000) Nat Neurosci 3: 545 – 550.
CrossRef Medline Web of Science
-
- مالينو ار ،
- ماين ZF ،
- هاياشي واي
(2000) Curr Opin Neurobiol 10: 352 – 357.
CrossRef Medline Web of Science
- ↵
- Scannevin RH ،
- هوغانير آر إل
(2000) Nat Rev Neurosci 1: 133 – 141.
CrossRef Medline Web of Science
روبنسون، تي إي وكولب، بي. (1999) (1997) يورو. جيه نيوروسي. 11، 1598-1604.
- ↵
- كاري م ،
- Smale ST
(2000) تنظيم النسخ في الكائنات حقيقية النواة (Cold Spring Harbour Lab. Press، Plainview، NY).
- ↵
- سبنسر فرجينيا
- ديفي الابن
(1999) Gene 240: 1 – 12.
CrossRef Medline Web of Science
 فيسبوك
 تويتر
- Google+
 CiteULike
 لذيذ
 يسو
 مندلي
المقالات التي تستضيفها HighWire Press تستشهد بهذه المقالة
- قانون المكافآت الطبيعية والعقاقير على آليات اللدونة العصبية الشائعة مع {Delta} FosB كوسيط رئيسي J. نيوروسكي. 2013 33 (8) 3434-3442
- المخدرات والجريمة والتخلق الوريدي من التخصيب Journal of Contemporary Criminal Justice 2012 28 (3) 314-328
- الملخص
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- الملخص
- النص الكامل (HTML)
- النص الكامل (PDF)
- يعمل المورفين على تنشيط عامل الاستجابة لعامل النسخ الستة والعشرون مثل عامل الاستجابة / 1 / المصل عن طريق الكينازات الخاضع للتنظيم خارج الخلايا 1 / 2 في خلايا F11 المشتقة من الخلايا العصبية الجذرية Dorsal Root Ganglia جي فارماكول. إكسب. ذر. 2012 342 (1) 41-52
- الآلية الجزيئية لمخدر الدواء: التغيرات الوراثية التي بدأها نيكوتين رئيس جين التعبير بواسطة الكوكايين Sci Transl Med 2011 3 (107) 107ra109
- تعزيز السكروز والكوكايين الذاتي الإدارة والعقاقير الناجم عن جديلة بعد فقدان VGLUT2 في الخلايا العصبية Midbrain الدوبامين في الفئران J. نيوروسكي. 2011 31 (35) 12593-12603
- نقص الأكسجة المتقطع المزمن يزيد من ضغط الدم والتعبير عن FosB / {Delta} FosB في المناطق اللاإرادية المركزية صباحا. ج. Physiol. Regul. Integr. شركات. الفيزيولوجيا. 2011 301 (1) R131-R139
- يضعف غياب مستقبل GPR37 / PAEL فسفرة Akt و ERK2 الموضعية و {Delta} تعبير FosB وتفضيل المكان المناسب للأمفيتامين والكوكايين FASEB J. 2011 25 (6) 2071-2081
- العلاقة بين مدة التعرض الأولي للكحول واستمرارية التسامح الجزيئي غير خطية J. نيوروسكي. 2011 31 (7) 2436-2446
- في Vivo Bioluminescence Imaging يكشف تنشيط المنشط بالتنشيط الأكسدي- بروتين- 1 في نواة بارافينتريكولار من الفئران مع ارتفاع ضغط الدم الوعائي Hypertension 2011 57 (2) 289-297
- تعبير overexpression من {Delta} FosB Reproduces الحركات اللاإرادية المزمنة التي يسببها ليفودوبا J. نيوروسكي. 2010 30 (21) 7335-7343
- الوسيط الوراثي للتأثيرات البيئية في الاضطرابات الذهانية الكبرى Schizophr Bull 2009 35 (6) 1045-1056
- تحقيقات MRI المستندة إلى الحمض النووي للتحديد المحدد للتعرض المزمن للأمفيتامين في الأدمغة الحية J. نيوروسكي. 2009 29 (34) 10663-10670
- متغير شجيري العمود الفقري اللدونة في الجرذان سحبها الكوكايين J. نيوروسكي. 2009 29 (9) 2876-2884
- Overexpression Screen in Drosophila Identifies Neuronal Roles of GSK-3 {beta} / shaggy as a Regulator of AP-1-Dependent Developmental Plasticity Genetics 2008 180 (4) 2057-2071
- نسخ التصوير بالرنين المغناطيسي: رؤية جديدة للدماغ الحي Neuroscientist 2008 14 (5) 503-520
- {Delta} FosB Induction in Orbitofrontal Cortex يتوسط التسامح مع الخلل المعرفي للكوكايين المستحث J. نيوروسكي. 2007 27 (39) 10497-10507
- ضعف دائم لاستعادة سلوكيات البحث عن الميتامفيتامين في الخلايا العصبية الفئران المشتقة من الخلايا العصبية المشتقة من الخط FASEB J. 2007 21 (9) 1994-2004
- {Delta} FosB in the Nucleus Accumbens Regulates Food and Reinforced Instrumental Behavior and Motivation J. نيوروسكي. 2006 26 (36) 9196-9204
- تنظيم {Delta} FosB Stability by Phosphorylation. J. نيوروسكي. 2006 26 (19) 5131-5142
- التعبير عن مستقبلات متحولات NMDA في الدوبامين D1 الخلايا المحتوية على المستقبِلات تمنع توعية الكوكايين وتقلل تفضيل الكوكايين J. نيوروسكي. 2005 25 (28) 6651-6657
- D1 Dopamine Receptors Modulate {Delta} FosB Induction in Rat Striatum after Interpittent Morphine Administration جي فارماكول. إكسب. ذر. 2005 314 (1) 148-154
- بيولوجيا الأعصاب من الفئران مختارة لنشاط عجلة تشغيل طوعي عالية Integr. شركات. بيول. 2005 45 (3) 438-455
- تأثير حرمان الماء والإماهة على تلوث c-Fos و FosB في نواة supraoptic nucleus و lamina terminalis region صباحا. ج. Physiol. Regul. Integr. شركات. الفيزيولوجيا. 2005 288 (1) R311-R321
- التحريض النسخي من FosB / {Delta} FosB Gene بواسطة الإجهاد الميكانيكي في Osteoblasts J Biol Chem 2004 279 (48) 49795-49803
- تحريض {دلتا} FosB في بنية الدماغ المرتبطة بالمكافأة بعد الإجهاد المزمن J. نيوروسكي. 2004 24 (47) 10594-10602
- تقوم الجرعة الجينية Sim1 بتنظيم استجابة التغذية التماثلية لزيادة الدهون الغذائية في الفئران صباحا. ج. Physiol. Endocrinol. متعب. 2004 287 (1) E105-E113
- تحليل ميكروأري للحمض النووي للتعبير الجيني في الخلايا العصبية للعصب البصري البشري استجابة للضغط الهيدروستاتيكي الفيزيولوجيا. Genomics 2004 17 (2) 157-169
- ينشغل Superoxide في تنشيط الجهاز العصبي المركزي والتشوه العضلي لفشل القلب الناتج عن احتشاء قلبي سيرك. احتياط 2004 94 (3) 402-409
- مستقبلات الأدينوزين A2A في التكيف العصبي لتحفيز الدوبامين المتكرر: الآثار المترتبة على علاج خلل الحركة في مرض باركنسون Neurology 2003 61 (90116) S74-81
- Sytoplasmic مقابل التوطين النووي للبروتينات ذات الصلة Fos في الضفدع ، Rana esculenta ، الخصية: في Vivo و Direct In Vitro Effect of Gonadotropin-Releasing Hormone Agonist بيول. Reprod. 2003 68 (3) 954-960
- Peramelolescent Mice Show Enhanced Delta FosB Upregulation in Response to Cocaine and Amphetamine J. نيوروسكي. 2002 22 (21) 9155-9159
- دلتا FosB ينظم عجلة الجري J. نيوروسكي. 2002 22 (18) 8133-8138
- النشاط CREB في النواة المتكئة قذيفة يتحكم في الاستجابات السلوكية للمؤثرات العاطفية بروك. NATL. أكاد. الخيال العلمي. الولايات المتحدة الأمريكية 2002 99 (17) 11435-11440
- علم النفس النفسي: فرص فهم الإدمان J. نيوروسكي. 2001 21 (21) 8324-8327