Biol Psychiatry. 2008 Dec 1, 64 (11): 941-50. Epub 2008 Jul 26.
Teegarden SL, Nestler EJ, Bale TL.
Lähde
Eläinbiologian laitos, Pennsylvanian yliopisto, Philadelphia, PA 19104-6046, USA.
Abstrakti
TAUSTA:
Herkkyys palkitsemiselle on ollut alttiina tekijälle, joka vaikuttaa sekä huumeiden väärinkäyttöön että ylikuumenemiseen. Palkkioherkkyyteen vaikuttavat taustamekanismit eivät kuitenkaan ole tiedossa. Oletimme, että dopamiinin signaloinnin dysregulaatio voi olla taustalla syy korkeampaan palkkioherkkyyteen, jolloin palkitsevien ärsykkeiden toiminta voisi normalisoida järjestelmän.
MENETELMÄT:
Käytimme geneettistä hiirimallia lisääntyneestä palkitsemisherkkyydestä, Delta FosB: n yliekspressoivasta hiirestä, tutkiakseen palkkareittien muutoksia vasteena maukkaalle, runsaalle rasvaiselle ruokavalioon. Näissä hiirissä palkkiosignaloinnin merkkiaineita tutkittiin sekä perus- että 6-viikkojen jälkeen. Hiiriä tutkittiin käyttäytymistestauksessa, jossa seurattiin runsaasti rasvaa sisältävää ruokavaliota, jotta arvioitiin tämän mallin haavoittuvuutta palkitsevien ärsykkeiden poistamisessa.
TULOKSET:
Tuloksemme osoittavat muuttuneen palkitsemisreitin aktivaation nucleus accumbens-hypotalamus-ventraalinen tegmentaalialue -piirissä, mikä johtuu Delta FosB:n yliekspressiosta nucleus accumbensissa ja striatumialueilla . Fosforyloidun syklisen adenosiinimonofosfaatin (cAMP) vaste-elementtiä sitovan proteiinin (pCREB), aivoperäisen neurotrofisen tekijän (BDNF) sekä dopamiinin ja syklisen adenosiinimonofosfaatin säätelemän fosfoproteiinin, jonka molekyylimassa on 32 kDa (DARPP-32), pitoisuudet nucleus accumbensissa olivat alentuneet Delta FosB -hiirillä, mikä viittaa dopamiinisignaloinnin vähenemiseen. Kuuden viikon runsasrasvainen ruokavalio korjasi nämä erot täysin, paljastaen maittavan ruokavalion voimakkaan palkitsevan vaikutuksen. Delta FosB -hiirillä havaittiin myös merkittävää liikkumisaktiivisuuden ja ahdistukseen liittyvien vasteiden lisääntymistä 24 tuntia runsasrasvaisen ruokavalion lopettamisen jälkeen.
Päätelmät:
Nämä tulokset osoittavat taustalla olevan herkkyyden palkitsemisen muutoksille, jotka liittyvät delta-fosb:n ja dopamiinisignaloinnin säätelyhäiriöihin. Tämä herkkyys voidaan normalisoida maittavilla ruokavalioilla ja se voi olla altistava fenotyyppi joissakin lihavuuden muodoissa.
esittely
Vaikka tietämyksemme ruokahalua ja kylläisyyttä säätelevistä hermojärjestelmistä kasvaa, lihavuuden määrä Yhdysvalloissa jatkaa nousuaan. Nykyisillä lääkehoidoilla on rajallinen teho, ja käyttäytymisen muutoksilla on heikko pitkän aikavälin hoitomyöntyvyydet (1). Kaloripitoisten, maukkaiden ruokien kulutus on yhdistetty aivojen stressi- ja palkitsemisreittien muutoksiin, mikä viittaa siihen, että tällaisten ruokien palkitsevat ominaisuudet saattavat ohittaa energiatasapainon signaalit (2–4). Runsasrasvaiset ruoat toimivat luonnollisina palkkioina, aktivoiden aivojen palkitsemiskeskuksia samalla tavalla kuin huumeet, ja niitä on käytetty sellaisinaan itsehoitoparadigmoissa (5–8). Siten on todennäköistä, että ylensyönnin ja huumeiden väärinkäytön käyttäytymisellä ja motivaatiolla on yhteisiä taustalla olevia mekanismeja, mikä voi avata uusia hoitomahdollisuuksia molempiin sairauksiin.
Tutkiessamme maittavien ruokien ja aivojen palkitsemista ja stressiä säätelevien reittien välistä suhdetta olemme aiemmin tunnistaneet molekyyli- ja biokemiallisia markkereita, jotka viittaavat vähentyneeseen palkitsemiseen ja lisääntyneeseen stressiin miellyttävän, runsasrasvaisen ruokavalion lopettamisen jälkeen. Samoin kuin huumeiden väärinkäytön yhteydessä, miellyttävälle ruokavaliolle altistuminen johti tutkimuksissamme transkriptiotekijä ΔFosB:n pitoisuuksien nousuun nucleus accumbensissa (NAc), joka on keskeinen aivojen palkitsemisjärjestelmä (9, 10) . Hiiret, jotka indusoitavasti yliekspressoivat ΔFosB:tä, osoittavat lisääntynyttä instrumentaalista vastetta ruokapalkkioon (11), mikä tekee niistä arvokkaan työkalun tutkittaessa palkitsemisherkkyyden ja palkitsemisjärjestelmän pitkäaikaisen säätelyhäiriön roolia miellyttävän ruokavalion molekyyli- ja biokemiallisissa vasteissa.
Tässä tutkimuksessa käytimme ΔFosB:tä yliekspressoivia hiiriä tutkiaksemme pitkäaikaisia muutoksia NAc-hypotalamus-ventraalinen tegmentaalialue (VTA) -neuropiirin palkitsemismarkkereissa vasteena maittavalle HF-ruokavaliolle. Aiempien näillä palkitsemisherkillä hiirillä tehtyjen tutkimusten perusteella oletimme, että ΔFosB:n aiheuttamat muutokset palkitsemisherkkyydessä liittyvät dopamiinisignaloinnin säätelyhäiriöön, joka johtuu NAc:n palautteesta VTA:lle. Lisäksi oletimme, että altistuminen energiselle HF-ruokavalion luonnolliselle palkitsemisjärjestelmälle normalisoisi näiden hiirten dopaminergisen järjestelmän, mikä johtaisi liioiteltuun vasteeseen HF-ruokavalion lopettamisen aiheuttamaan stressiin . Maistuvan ruokavalion ainutlaatuinen käyttö palkitsevana aineena mahdollistaa hypotalamuksen panosten sisällyttämisen palkitsemispiireihin fenotyypiin, joka voi ennustaa hoitoresistenttiin lihavuuteen alttiita populaatioita. Tämän hypoteesin tutkimiseksi tutkimme dopamiinineurotransmission markkereita, mukaan lukien pCREB, BDNF ja DARPP-32 NAc:ssa sekä tyrosiinihydroksylaasi ja dopamiinikuljettaja VTA:ssa, HF-altistuksen jälkeen. Tutkimme myös tiettyjä energiatasapainon markkereita, joiden tiedetään vaikuttavan dopamiinin tuotantoon, mukaan lukien leptiini- ja oreksiinireseptorit VTA:ssa ja oreksiinin ilmentyminen lateraalisessa hypotalamuksessa.
Materiaalit ja menetelmät
Eläimet
Miesbitransgeeniset hiiret, jotka indusoitiin yli-ilmentämään AFosB: tä dynorfiinipositiivisissa neuroneissa NAc: ssä ja selkästriatumissa (Kelz et ai., 1999), tuotettiin sekavalla taustalla (ICR: C57Bl6 / SJL) Texas Southwestern Medical Centerin yliopistossa ja ylläpidettiin ja testattu Pennsylvanian yliopistossa. Kaikki hiiret pidettiin doksisykliinillä (100 μg / ml juomavedessä), kunnes ne saapuivat Pennsylvanian yliopistoon. Yli-ilmentymisen indusoimiseksi doksisykliini poistettiin (n = 23) (12). Kontrollihiiret (n = 26) saivat edelleen lääkettä. Hiirille annettiin ruokavalioryhmiä kahdeksan viikkoa doksyliinin poiston jälkeen, jolloin ajan ilmaisun on osoitettu saavuttavan maksimitasot (13). Hiiriä pidettiin 12: 12-valo-pimeässä syklissä (valot 0700: ssa) ruoan ja veden kanssa, jotka olivat saatavilla ad libitum. Kaikki tutkimukset suoritettiin Pennsylvanian yliopiston eläinlääkintä- ja hoitokomitean hyväksymien kokeellisten protokollien mukaisesti, ja kaikki menettelyt suoritettiin institutionaalisten ohjeiden mukaisesti.
Ruokavalio altistuminen
Hiiriä pidettiin talon chow'lla (n = 16) tai laitettiin HF: ään (n = 16-17) kuuden viikon ajan. House chow (Purina Lab Diet, St. Louis, MO) sisälsi 4.00 kcal / g, joka koostui 28% proteiinista, 12% rasvasta ja 60% hiilihydraatista. HF-ruokavalio (Research Diets, New Brunswick, NJ) sisälsi 4.73 kcal / g, joka koostui 20% -proteiinista, 45% -rasvasta ja 35% -hiilihydraatista.
Biokemia ja geenien ilmentyminen
Hiiriä analysoitiin kuuden viikon ruokavalion jälkeen. Aivot poistettiin pääkallosta ja joko jäädytettiin koko jäällä tai NAc: llä leikattiin (noin 0.5 - 1.75 mm bregmasta, 3.5 - 5.5 mm: n syvyydessä) ja pakastettiin nestemäisessä typessä. Kudosta säilytettiin -80 ° C: ssa, kunnes se määritettiin.
Biokemialliset analyysit
Western blot -menetelmiä kuvataan täydentävissä materiaaleissa. Käytetyt vasta-aineet olivat: Cdk5, CREB ja BDNF (1: 500, Santa Cruz Biotechnology, Santa Cruz, CA) ja fosfo- CREB (pCREB) (Ser 133) (1: 500, Cell Signaling Technology, Danvers, MA).
Reseptorin autoradiografia
Yksityiskohtaiset menetelmät autoradiografialle kuvataan täydentävissä materiaaleissa. Käytetyt ligandit olivat 2 nM H3 - SCH 23390 ja 5 nM H3 - spiperone (PerkinElmer, Boston, MA).
In situ -hybridisaatio
Kudoksen käsittely ja hybridisaatio suoritettiin kuten aiemmin on kuvattu (14). DARPP-32-koetin antoi ystävällisesti P. Greengard (Rockefeller University), ja orexin-koetin J. Elmquist (Texas University of Texas Southwestern Medical Center). DARPP-32: ia varten analysoidut diat lisättiin kalvoon 3-päivinä, ja oreksiinille määritetyt diat lisättiin kalvoon 4-päivinä. Elokuvakuvien kvantifiointi suoritettiin kuten aiemmin on kuvattu (10).
QRT-PCR
RNA eristettiin VTA: sta ja yksittäisten geenien ekspressio arvioitiin käyttäen TaqMan-geeniekspressiotestejä (Applied Biosystems, Foster City, CA). Yksityiskohtaiset menetelmät ja tilastolliset analyysit löytyvät lisämateriaaleista.
Käyttäytymistutkimukset
Jotta voitaisiin tutkia palkkioherkkyyden vaikutuksia ruokavalion aiheuttamiin käyttäytymismuutoksiin, hiiren alaryhmä poistettiin HF: stä neljän viikon altistumisen jälkeen ja palautettiin talon chow (n = 9-ohjaus, n = 8 ΔFosB). Kaksikymmentäneljä tuntia lääkkeen poiston jälkeen hiirille altistettiin avoimen kentän testi aikaisemmin julkaistun ruokavalion poisto-paradigman (10) mukaisesti. Lyhyesti sanottuna hiiri asetettiin avoimen kentän laitteen keskelle ja sitä seurattiin viisi minuuttia. Mitattiin linjan risteyksiä, ulosteen boli, keskellä oleva aika ja risteytykset keskustaan.
tilastotiedot
Kaikki tiedot, paitsi Western blot -analyysit, analysoitiin käyttäen kaksisuuntaista ANOVA: ta, jota seurasi Fisherin PLSD-testi doksisykliinihoidolla (AFosB-ilmentyminen) ja ruokavalion tila riippumattomina muuttujina. RT-PCR-analyysejä varten alennettua P-arvoa käytettiin korjaamaan useita vertailuja toisiinsa liittyvien geenien ryhmissä (katso lisäaineistot). Western-blotit analysoitiin käyttäen opiskelijan t-testiä, jossa doksisykliinihoito oli riippumaton muuttuja, verraten samalla blotilla olevia optisia tiheyksiä. Kaikki tiedot esitetään keskiarvona ± SEM.
tulokset
Biokemialliset erot
Molekyylireittien selvittämiseksi, jotka ovat lisääntyneen palkkiherkkyyden taustalla AFosB: tä yli-ilmentävissä hiirissä, NAc: ssä tutkittiin useiden keskeisten signalointimolekyylien tasoja. Cdk5: n tason kohoamisella AOSFosB-hiirten NAc: ssä oli suuntaus verrattuna ditterisykliinillä ylläpidettyihin pentutovereiden kontrollieläimiin (F = 5.1, P = 0.08; kuvio 1A). AFosB-hiiret ilmentivät merkittävästi alentuneita pCREB-tasoja (F = 7.4, P <0.05; kuvio 1B) samoin kuin CREB: n kokonaispitoisuuksia (F = 5.4, P = 0.05; kuvio 1C). Merkittävä väheneminen BDNF: ssä havaittiin myös AFosB-hiirten NAc: ssä (F = 10.6, P <0.05; kuva 1D).
Kuva 1
AFosB: a yliekspressoivat hiiret osoittivat biokemiallisia merkkejä pelkistetystä dopamiinin signaloinnista NAc: ssä
Ruokavalio ja paino suurella rasvaisella ruokavaliosta
Seuraavaksi tutkimme luonnollisesti palkitsevan HF-ruokavalion vaikutuksia signalointimolekyylien muutoksiin ΔFosB-yliekspressoivissa hiirissä. AfosB-hiirten ja kontrollien välillä ei ollut eroja ruoan saannissa joko talossa tai HF: ssä. Kuitenkin kehon painoon normalisoitunut kalorien saanti väheni HF-altistuksessa, joka oli spesifistä AFosB-hiirille (F = 11.2, P <0.01; kuva 2A). Ruokavalion altistuksen kuuden viikon lopussa HF: tä saaneet hiiret painoivat merkittävästi enemmän kuin chow-ruokavaliolla olevat (F = 17.2, P <0.001), ja ΔFosB-hiiret painivat kokonaisuutena vähemmän kuin kontrollit (F = 5.6, P <0.05; kuva. 2B). Tämä vaikutus oli spesifinen ryhmien välisille eroille chow-ruokavaliossa (P <0.05).
Kuva 2
ΔFosB: n yliekspressoivat hiiret eivät osoittaneet eroja ruoan saannissa joko chow- tai korkean rasvan (HF) ruokavaliossa
Biokemialliset erot rasvaisen ruokavalion suhteen
Sen selvittämiseksi, miten HF-ruokavalio voisi muuttaa NAc-signaloinnin peruseroja, tutkittiin samoja signalointiproteiineja, joita tutkittiin lähtötilanteessa eläimillä, jotka olivat saaneet kuusi viikkoa HF: ää. Cdk5-tasoilla ei ollut merkittäviä eroja (kuva 3A). PCREB: n ja CREB: n tasot eivät olleet enää erilaiset kuuden viikon HF: n jälkeen (kuva 3B, C). BDNF: n tasot kohosivat merkittävästi AFosB-hiirissä kuuden viikon HF-altistuksen jälkeen (F = 6.5, P = 0.05; kuvio 3D).
Kuva 3
Korkean rasvan (HF) ruokavalio paransi signalointieroja, joita havaittiin AFosB: n yliekspressoivien hiirien NAc: ssä
Dopamiinireseptorin autoradiografia
Käytimme reseptorin autoradiografiaa arvioidaksemme, liittyvätkö AFosB: n aiheuttamat muutokset NAc: n dopamiinisignaloinnissa dopamiinireseptorin ilmentymisen muutoksiin (kuva 4A). Rasvainen ruokavalio näytti lisäävän hieman D1-dopamiinireseptoriin sitoutumisen tiheyttä (P = 0.14), ja tämä ero oli suurempi AFosB-hiirissä (kuvio 4B). D1: n sitoutumisalueen lisääntymiselle oli myös suuntaus HF: n jälkeen (P = 0.06), ja post hoc -testit osoittivat tämän olevan merkittävää AFosB-hiirissä (P <0.05; kuva 4C). Päinvastoin kuin D1-reseptoreilla, ei muutoksia D2-reseptorin sitoutumistiheydessä (kontroll chow = 97.6 ± 6.9, kontrolli HF = 101.1 ± 8.2, ΔFosB chow = 91.6 ± 1.0, ΔFosB HF = 94.8 ± 9.5) tai sitoutumisalueella (kontroll chow = 47.3 ± 3.4, kontrolli HF = 53.8 ± 6.0, AFosB chow = 51.9 ± 3.7, AFosB HF = 49.0 ± 3.3) NAc: ssä havaittiin.
Kuva 4
Korkean rasvan ruokavalio (HF) johti muutoksiin D1-dopamiinireseptorin sitoutumiseen ja DARPP-32: n ilmentymiseen ΔFosB: n yliekspressoivien hiirien ytimessä accumbens (NAc)
DARPP-32-ilmaisu NAc: ssä
In situ -hybridisaatiota käytettiin määrittämään DARPP-32: n ilmentymistasot NAc: ssä (kuvio 4D). Runsaasti rasvaa sisältävä ruokavalio lisäsi merkittävästi DARPP-32: n ilmentymistä tällä aivojen alueella (F = 5.1, P <0.05), ja ruokavalion ja ΔFosB-ilmentymisen välillä oli merkittävä vuorovaikutus (F = 8.9, P <0.05), ΔFosB-hiirillä oli suurempi ruokavalion aiheuttama muutos (kuva 4E). Perusero DARPP-32-ilmentymässä verrokkihiiren ja AFosB-hiirten välillä paljastettiin post hoc -testillä (P <0.01), samoin kuin merkittävä DARPP-32-ilmentymisen kasvu AFosB-hiirillä HF: llä (P <0.01).
Geenien ilmentyminen VTA: ssa
QRT-PCR: ää käytettiin arvioimaan muutoksia geeniekspressiossa VTA: ssa kohdentamalla useita avaingeenejä, jotka olivat aiemmin osallisina palkkion säätelyssä. Kaikki näytteet normalisoitiin p-aktiinille. Sen varmistamiseksi, että p-aktiinin ilmentymistä ei muutettu hoidolla, suoritettiin erillinen määritys p-aktiinin vertaamiseksi toisen sisäisen kontrollin, GAPDH: n, kanssa. P-aktiinin ilmentymisessä ei ollut merkittäviä eroja (ΔCT-arvot, β-aktiini - GAPDH: kontroll chow = 2.29 ± 0.21, kontrolli HF = 2.01 ± 0.04, ΔFosB chow = 2.32 ± 0.49, ΔFosB HF = 2.37 ± 0.10).
Tyrosiinihydroksylaasin ilmentymisessä havaittiin trendi vuorovaikutukselle AFosB-ilmentymisen ja ruokavalion hoidon välillä (F = 3.6, P <0.06; kuvio 5A). Kuusi viikkoa altistusta HF: lle näytti vähentävän tyrosiinihydroksylaasin ilmentymistä kontrollihiirissä ja lisäävän ilmentymistä AFosB-hiirissä. Merkittävä vuorovaikutus AFosB: n ilmentymisen ja ruokavalion altistumisen välillä havaittiin dopamiinikuljettimen ilmentymisessä (F = 6.7, P <0.03; kuvio 5B). Samoin kuin tyrosiinihydroksylaasi, altistuminen HF: lle vähensi dopamiinin kuljettajaekspressiota kontrollihiirissä ja lisäsi merkittävästi ilmentymistä AFosB-hiirissä (P <0.05). Perusero dopamiinin kuljettajaekspressiossa vertailu- ja AFosB-hiirten välillä ei saavuttanut merkitsevyyttä (P = 0.16), mutta 6 viikon HF: n jälkeen AFosB-hiiret ilmentivät merkittävästi kohonneita dopamiinitransportteritasoja verrokkiin verrattuna (P <0.05).
Kuva 5
Korkean rasvan ruokavalion (HF) ja AFosB: n ilmentyminen johti muutoksiin useiden keskeisten molekyylien ilmentymisessä VTA: ssa
Oli suuntaus, joka osoitti lisääntyneen AFosB-ilmentymisen vaikutusta TrkB-tasojen vähentämiseen VTA: ssa (F = 5.7, P <0.04; kuva 5C). Vaikka ei ollut tärkeimpiä vaikutuksia k-opioidireseptorien ilmentymiseen, ilmeni suuntaus vähentyneeseen ilmentymiseen AFosB-hiirissä (P = 0.08; kuva 5D). Leptiinireseptorin ilmentyminen määritettiin myös VTA: ssa. Ruokavalion altistumisen merkittävä vaikutus havaittiin (F = 6.1, P <0.03), HF vähensi merkittävästi leptiinireseptorin tasoja VTA: ssa sekä AFosB- että kontrollihiirissä (kuvio 5E). Oreksiinireseptorin 1 ilmentymistä VTA: ssa tutkittiin myös. Ruokavaliolla oli merkittävä vaikutus oreksiinireseptorin ilmentymiseen (F = 9.0, P <0.02), kun HF: lle altistetut hiiret ekspressoivat korkeampia tasoja VTA: ssa (kuvio 5F). Oli myös trendi, että AFosB-hiiret ilmentävät oreksiinireseptorin 1 yleisesti korkeampia tasoja tällä aivojen alueella (P <0.05).
Orexiinin ilmentyminen sivusuunnassa
Mitattiin oreksiinitasot lateraalisessa hypotalamuksessa, VTA: n orexinergisen innervaation alkuperä, in situ -hybridisaatiolla (kuva 6A). AfosB-ilmentymisen ja ruokavalion altistuksen välillä oli merkittävä vuorovaikutus oreksiiniekspressiossa (F = 9.1, P <0.01), HF: n lisääntyessä merkittävästi oreksiinitasoja kontrollihiirissä (P <0.05) ja vähenemällä ilmentymistä ΔFosB-hiirissä (kuvio 6B). Vaikka perustilassa ei ollut merkittäviä eroja oreksiiniekspressiossa, 6 viikon HF: n jälkeen AFosB-hiiret ilmentivät merkittävästi alentuneita oreksiinitasoja verrokkiin verrattuna (P <0.05).
Kuva 6
Korkean rasvan (HF) ruokavalion vaikutukset orexin-ilmentymiseen kontrollissa (Ctrl) ja AFosB: n yli-ilmentävissä hiirissä olivat erilaiset
Be havioral analysis
Ruokavalion muutoksista johtuvien kiihottumisen ja emotionaalisuuden muutosten arvioimiseksi hiiret altistettiin avoimen kentän testille 24 tuntia HF-ruokavalion lopettamisen jälkeen (10). Kokonaisviivan ylityksiin, jotka pisteytettiin kiihottumisen mittana, vaikuttivat merkittävästi AFosB-ilmentyminen (F = 6.6, P <0.05) ja ruokavalio (F = 4.6, P <0.05; kuvio 7A). ΔFosB-hiiret olivat aktiivisempia uudessa ympäristössä kuin käänteet, ja post hoc -testit osoittivat, että HF: stä vedetyt hiiret olivat merkittävästi aktiivisempia kuin chow'lle altistetut (P <0.05). Ulosteen boli laskettiin ahdistuksen kaltaisen käyttäytymisen mittana (10). AFosB-ilmentymisen päävaikutus (F = 10.2, P <0.01) oli siinä, että AFosB: tä yli-ilmentävät hiiret tuottivat enemmän ulosteen boleja uudessa ympäristössä, erityisesti talon chow- ja HF-vieroitusryhmissä (kuvio 7B). HF-ruokavaliolla pidetyt AFosB-hiiret tuottivat vähemmän ulosteen boli kuin chow'lla pidetyt ja 24 tuntia ennen testiä vedetyt. Ruokavalio ei vaikuttanut vaikuttaneen kontrollihiiriin. Ei ΔFosB-ilmentymällä eikä ruokavaliolla ei ollut merkittäviä vaikutuksia avoimen kentän keskellä vietettyyn aikaan (kontrollirouhi = 14.5 ± 3.1 sekuntia, kontrolli HF = 18.0 ± 3.2 sekuntia, kontrolli W / D = 15.4 ± 1.9 sekuntia, ΔFosB chow = 16.9 ± 2.4 s, A FosB HF = 13.1 ± 3.9 s, A FosB W / D = 19.8 ± 2.6 s).
Kuva 7
Hiiret, jotka ekspressoivat ΔFosB: tä, olivat herkempiä korkean rasvan ruokavalion (HF) poiston vaikutuksille
Keskustelu
Lihavuuden hoidossa on kriittisesti tunnistettava tekijät, jotka vaikuttavat ylensyöntialttiuteen ja painonnousuun. Aivojen palkitsemisreiteillä on tärkeä rooli motivaatiossa ja vasteessa maukkaisiin ruokiin ja ruokavalion muutoksiin (6, 10, 15, 16). Koska oreksigeeniset ja anoreksigeeniset signaalit voivat vaikuttaa suoraan palkitsemissignaaliin hypotalamus-VTA-NAc-piirin kautta, palkitsemiskeskuksissa olevien energiapitoisiin maukkaisiin ruokavalioihin reagoivien geenien selvittäminen voi tarjota uusia terapeuttisia kohteita lihavuuden hoidossa (17, 18). Siksi tutkimme palkitsemis- ja energiatasapainosignaloinnin biokemiallisia ja molekyylimarkkereita hypotalamus-VTA-NAc-piirissä vasteena HF-ruokavaliolle ΔFosB:tä yliekspressoivilla hiirillä mallina lisääntyneelle herkkyydelle palkitsemisen muutoksille (13, 19, 20) ja käyttäytymisherkkyydelle ruokavalion lopettamisen jälkeen. Oletimme, että dopamiinisignaloinnin perustason säätelyhäiriö ΔFosB-hiirillä normalisoituisi HF-ruokavalion palkitsevien vaikutusten ansiosta, jotka kattavat energiatasapainosignaalien ja dopamiinijärjestelmän leikkauspisteen.
Tutkiaksemme dopamiinisignaloinnin säätelyn häiriöihin viittaavia markkereita NAc:ssä, tutkimme D1-reseptorien tasoja ja alavirran efektoreita. Vaikka D1-reseptorin sitoutumisessa ei ollut merkittäviä eroja, HF-altistuksella oli trendi lisätä sitoutumispinta-alaa ΔFosB-hiirissä . Tämä on mielenkiintoista, koska lääkkeen indusoima ΔFosB ja luonnolliset palkkiot näyttävät olevan vallitsevia dynorfiinipositiivisissa keskikokoisten piikkineuronien alatyypeissä, jotka ilmentävät ensisijaisesti D1-reseptoreita (9, 21). Alavirran dopamiinisignalointikohteen pCREB:n tasot olivat merkittävästi alentuneet ΔFosB-hiirissä, mikä tukee D1-reseptorin aktivaation vähenemistä tällä aivoalueella (22, 23). Mielenkiintoista on, että havaitsimme myös merkittävän laskun ΔFosB-hiirten kokonais-CREB-tasoissa, mikä viittaa dopamiinisignaalin välityskyvyn edelleen heikkenemiseen, joka voi olla toissijainen pCREB:n pitkittyneestä laskusta johtuvalle palautteelle (24). BDNF:n ilmentymistä säätelee pCREB, se kohoaa D1-aktivaation myötä ja on tärkeä palkkioon liittyvän neuroplastisuuden välittäjä NAc:ssä (25, 26). Näin ollen havaitsimme merkittävän BDNF-proteiinin vähenemisen ΔFosB-hiirten NAc:ssa.
Kaikki NAc:n keskikokoiset piikkisolut ilmentävät DARPP-32:ta (27). Sen lukuisat alavirran efektorit tekevät siitä tärkeän toimijan palkitsemisreiteissä (28), ja sillä on havaittu olevan yhteys huumeriippuvuuteen ja muihin dopamiinijärjestelmään liittyviin häiriöihin, kuten mielialahäiriöihin ja skitsofreniaan (27, 29). Havaitsimme DARPP-32:n ilmentymisen merkittävää perustason vähenemistä ΔFosB-hiirten NAc:ssa. DARPP-32:n ilmentymistä säätelee BDNF, ja siksi vähentynyt ilmentyminen voi liittyä suoraan ΔFosB-hiirissä havaittuihin BDNF-tasojen laskuihin (27, 29, 30). Jopa kohtuulliset muutokset DARPP-32:n fosforylaatiotilassa voivat johtaa merkittäviin muutoksiin NAc:n solunsisäisessä signaloinnissa (27). Aiemmissa tutkimuksissa ei ole raportoitu muutoksia DARPP-32-proteiinissa ΔFosB-hiirissä 12 viikon doksisykliinilääkityksen lopettamisen jälkeen, kun tehtiin laajempi striataalinen arviointi (31), mikä viittaa siihen, että ΔFosB:n vaikutukset DARPP-32:een voivat olla aika- ja aluekohtaisia.
Oletimme, että ΔFosB-hiirten NAc:n dopamiinisignaloinnin indeksien dramaattiset vähenemiset todennäköisesti liittyivät muutoksiin VTA:n dopamiiniprojektioneuroneissa, vaikka ΔFosB:tä ei ilmennetä liikaa näissä neuroneissa . Siksi tutkimme dopamiiniin liittyvien geenien ilmentymistä VTA:ssa, mukaan lukien tyrosiinihydroksylaasi ja dopamiinitransporteri. Tyrosiinihydroksylaasin ja dopamiinitransporterin tasot korreloivat positiivisesti dopamiinin tuotannon kanssa. ΔFosB-hiirillä havaittiin trendi tyrosiinihydroksylaasin vähenemiseen ja dopamiinitransporterin merkittävään vähenemiseen, mikä on sopusoinnussa dopamiinisignaloinnin säätelyn häiriön kanssa NAc:ssa . Koska nämä dopamiiniin liittyvien geenien perustason vähenemiset ΔFosB-hiirten VTA:ssa oletettavasti heijastavat muuttunutta palautetta NAc:sta pitkäaikaisen ΔFosB:n yliekspression aikana , tutkimme BDNF-reseptorin, TrkB:n, ilmentymistä mahdollisena NAc:n palautteen mekanismina VTA:lle (32). Samoin kuin tyrosiinihydroksylaasin ja dopamiinitransporterin, TrkB:n ilmentyminen osoitti myös trendin olla perustason laskua ΔFosB-hiirissä, mutta tämä ei saavuttanut merkitsevyyttä korjattuna useille vertailuille. BDNF-TrkB-kompleksi voi kulkeutua retrogradisesti ja toimia VTA:n sisällä vaikuttaen paikalliseen geenien ilmentymiseen ja edistäen solujen kasvua ja ylläpitoa (33). Lisäksi BDNF:n aktivoima presynaptinen TrkB NAc:ssä voi suoraan stimuloida dopamiinin hermovälitteistä signaalinsiirtoa (32), mikä tukee taustalla olevaa dopamiinisignaloinnin vähenemistä näillä hiirillä.
Dynorfiinin aktivoima κ-opioidireseptori säätelee dopamiinisignalointia ja on toinen mekanismi, jolla NAc antaa palautetta VTA:lle (34). Havaitsimme, että κ-opioidireseptorin ilmentyminen VTA:ssa väheni ΔFosB-hiirissä. Koska ΔFosB:n yliekspression on osoitettu vähentävän dynorfiinin ilmentymistä NAc:ssa (20), ΔFosB-hiirillä on todennäköisesti merkittäviä VTA:n κ- opioidiaktivaation vähenemisiä. Vaikka dynorfiinisignalointi normaalisti estää dopamiinineuroneja (35), rotilla, jotka itse annostelevat huumeita, on alentuneet dynorfiinitasot NAc:ssa, mikä viittaa siihen, että perustavanlaatuisesti vähentynyt dynorfiinisignalointi lisää palkitsemisherkkyyttä (36, 37). Dynorfiini-κ-opioidijärjestelmän säätelyhäiriöt on yhdistetty huumeiden väärinkäytön syntymiseen ja jatkumiseen, mikä tukee opioidisignaloinnin kriittistä tasapainoa dopamiinireittien normalisoinnissa (38).
Energiapitoisen HF-ruokavalion palkitsemiskyvyn perusteella oletimme, että dopamiinin ja opioidien palkitsemissignaalien säätelyn häiriö ΔFosB-hiirillä altistaisi nämä hiiret tehostuneille palkitsemisvasteille tällaiseen ruokavalioon, normalisoiden siten palkitsemisjärjestelmän hypotalamus-VTA-NAc-piirin aktivoitumisen kautta . Kuuden viikon ruokavalioaltistuksen aikana ei havaittu eroja ravinnon saannissa ΔFosB- ja kontrollihiirten välillä, mikä viittaa siihen, että ΔFosB-hiirten palkitsemissignaalien biokemiallisissa ja molekyylitason markkereissa havaitut muutokset eivät johtuneet kulutettujen kalorien eroista. Kuten odotettua, pCREB:n, kokonais-CREB:n, BDNF:n, DARPP-32:n ja κ-opioidireseptorien tasoissa ΔFosB- ja kontrollihiirten välillä havaitut perustason erot olivat lieventyneet, todennäköisesti johtuen lisääntyneestä dopamiinin tuotosta ΔFosB-hiirillä HF-ruokavaliolla (29, 39-41).
Sekä tyrosiinihydroksylaasin että dopamiinikuljettajan tutkiminen VTA:ssa paljasti yllättäviä vastakkaisia vasteita ΔFosB- ja kontrollihiirten välillä HF:n jälkeen . Kontrollihiirillä havaittiin tyrosiinihydroksylaasin ja dopamiinikuljettajan ilmentymisen vähenemistä, kun taas ΔFosB-hiirillä havaittiin molempien dopamiiniin liittyvien geenien ilmentymisen lisääntymistä. Mielenkiintoista on, että krooninen kokaiinin tai metamfetamiinin anto muuttaa tyrosiinihydroksylaasin ilmentymistä VTA:ssa (42-44), mikä viittaa siihen, että ΔFosB-hiiret saattavat kokea HF:n luonnollisen palkkion voimakkaammin kuin kontrollihiiret.
Jotta voitaisiin tutkia, miten potentiaalinen hypotalaminen sisääntulo VTA: han voi välittää signaaleja, jotka heijastavat energian tasapainoa, tutkittiin myös leptiinireseptorin ja oreksiinireseptori-1: n ilmentymistä. Kiertävät leptiinitasot lisääntyvät HF: llä, ja leptiini voi vuorostaan toimia VTA: ssa dopamiinin signaloinnin muuttamiseksi (18, 45). VTA-leptiinireseptorin ekspressiota vähennettiin vastaavasti HF: llä sekä FosB: ssä että kontrollihiirissä samalla tavalla kuin painon nousu ja ruokavalion saanti HF: n aikana. Suuri rasva lisäsi myös oreksiinireseptori-1: n ilmentymistä sekä AFosB: n että kontrollihiirien VTA: ssa. Orexin aktivoi dopamiinin hermosoluja VTA: ssa, edistää VTA-plastisuutta ja lisää dopamiinitasoja NAc: ssä (46-48). Korkean rasvan ruokavalion on osoitettu lisäävän oreksiinien ilmentymistä hiirissä havaintojen (49, 50) mukaisesti. Näin ollen oreksiinireseptorin lisääntynyt ilmentyminen sekä muutokset leptiinisignaloinnissa VTA: ssa voivat edistää ruokavalion palkitsemista sekä AFosB: ssä että kontrollihiirissä, tukemalla dissosiaatiota polkujen välillä, jotka välittävät energian tasapainosignaaleja, ja niitä, jotka on sidottu suoraan palkkioon.
Palkkion lopettamisen stressiä aiheuttavien vaikutusten tutkimiseksi hiiriä tutkittiin avokenttätestissä 24 tuntia HF:n poistamisen jälkeen. ΔFosB-hiiret olivat herkempiä suositellun ruokavalion lopettamisen akuuteille vaikutuksille ja osoittivat lisääntynyttä kiihottumisaktiivisuutta ja ulosteen bolituotantoa uudessa avoimessa areenassa verrattuna kaikkiin muihin kontrolli- ja ruokavalioryhmiin. ΔFosB-hiiret osoittivat myös tässä testissä mielenkiintoisen käyttäytymismallin, joka viittaa palkinto- ja stressiherkkyyteen: HF-ruokavalio vähensi aluksi ulosteen bolituotantoa verrattuna ruokaan, ja lopettaminen jälleen lisäsi tätä ahdistukseen liittyvää vastetta. Tämä havaittu avoimen kentän aktiivisuuden lisääntyminen ei korreloinut oreksiinin ilmentymisen muutosten kanssa, mikä viittaa yhteyteen stressin aiheuttamaan kiihottumiseen, joka ei ole pelkästään oreksiinin välittämän signaloinnin muutosten vaikutus. Kaiken kaikkiaan nämä tiedot tukevat hypoteesiamme, jonka mukaan ΔFosB-hiiret olisivat herkempiä suositellun ruokavalion lopettamisen akuuteille vaikutuksille lisääntyneen palkintoherkkyytensä vuoksi.
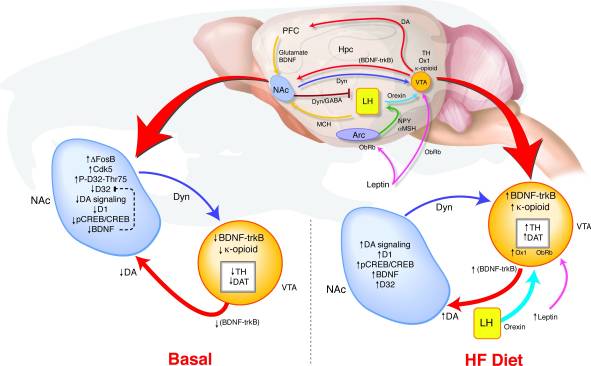
Kuinka ΔFosB:n pitkäaikainen yli-ilmentyminen NAc:ssa johtaa tällaisiin muutoksiin käyttäytymisessä ja palkitsemissignaaleissa ? Olemme esittäneet VTA:n samanaikaisen havaitsemisen mallin, jossa NAc:n ja hypotalamuksen muuttunut palaute välittää palkitsemistilaa koskevia signaaleja dopamiinijärjestelmän säätelyn määrittämiseksi, mikä voi tukea yhteyttä palkitsemisreitin säätelyn toimintahäiriön ja lihavuusalttiuden välillä (kuva 8). HF-altistuksen aikana useat sekä energiatasapainoa että palkitsemistilaa heijastavat syötteet yhtyvät VTA:han. Leptiinin ja oreksiinin signaloinnin lisääntyminen sekä NAc:n muuttunut palaute lateraaliseen hypotalamukseen voivat vaikuttaa siihen, miten nämä oreksigeeniset signaalit reagoivat HF:ään ΔFosB-hiirissä (17, 18, 45, 47, 51-53). Runsasrasvaisen ruokavalion aiheuttama BDNF:n nousu voi antaa palkitsemispalautetta VTA:lle, mikä edistää edelleen muutoksia dopamiiniin liittyvässä geenien ilmentymisessä.
Kuva 8
Korkean rasvan (HF) ruokavalio normalisoi dysreguloitua palkkio-signalointia AFosB-hiirissä
Nämä tulokset kuvaavat palkitsemisherkkyyden molekyylimarkkereita ja osoittavat, että dopamiinijärjestelmän pitkäaikainen dysregulaatio voi altistaa yksilön riippuvuudelle ja lihavuudelle. Lisäksi nämä tiedot tarjoavat tärkeän askeleen kohti mahdollisten uusien terapeuttisten kohteiden määrittämistä liikalihavuuden ja muiden häiriöiden hoidossa ja ehkäisyssä, jotka voivat keskittyä palkitsemisjärjestelmään. Tulevaisuudessa on tärkeää selvittää, miten tämä järjestelmä reagoi HF-ruokavalion poistamiseen, sekä tutkia mahdollisia sukupuolieroja herkkyydessä palkkio- ja rasva-ruokavalioon.
Oheismateriaali
Supp. menetelmät
Klikkaa tästä nähdäksesi. (61K, doc)
Kiitokset
Kirjoittajat haluavat kiittää Cathy Steffenia avustuksesta eläinten kasvatuksessa ja siirrossa. Tätä työtä tukivat Pennsylvanian yliopiston diabeteksen keskuksen (DK019525) avustukset sekä kansallisen mielenterveyslaitoksen (R01 MH51399 ja P50 MH66172) ja kansallisen huumeiden väärinkäytön instituutin (R01 DA07359) avustukset.
alaviitteet
Taloudelliset tiedotteet: Kaikki kirjoittajat ilmoittavat, että heillä ei ole biolääketieteellisiä taloudellisia etuja tai eturistiriitoja.
Viitteet
1. Wadden TA, Berkowitz RI, Womble LG, Sarwer DB, Phelan S, Cato RK, Hesson LA, Osei SY, Kaplan R, Stunkard AJ. Satunnaistettu elämäntapamuutoksen ja farmakoterapian kokeilu lihavuuteen. N Engl. J. Med. 2005; 353 (20): 2111-20. [PubMed]
2. Blendy JA, Strasser A, Walters CL, Perkins KA, Patterson F, Berkowitz R, Lerman C. Vähentynyt nikotiinipalkka lihavuudessa: ihmisen ja hiiren ristiin vertailu. Psykofarmakologia (Berl) 2005
3. Franken IH, Muris P. Yksilölliset palkkioherkkyyserot liittyvät elintarvikkeiden himoon ja suhteelliseen painoon terveillä naisilla. Ruokahalu. 2005; 45 (2): 198-201. [PubMed]
4. Kelley AE, Berridge KC. Luonnollisten palkintojen neurotiede: merkitys riippuvuutta aiheuttaville lääkkeille. J Neurosci. 2002; 22 (9): 3306-11. [PubMed]
5. Cagniard B, Balsam PD, Brunner D, Zhuang X. Hiirillä, joilla on kroonisesti kohonnut dopamiini, on parantunut motivaatio, mutta ei oppiminen, elintarvikepalkkiona. Neuropsychopharmacology. 2006; 31 (7): 1362-70. [PubMed]
6. Liang NC, Hajnal A, Norgren R. Sham, joka syöttää maissinöljyä, kasvaa dopamiinia rotassa. Am J Physiol Regul Integr Comp Physiol. 2006; 291 (5): R1236-9. [PubMed]
7. Mendoza J, Angeles-Castellanos M, Escobar C. Herkullisen aterian kulkeutuminen aiheuttaa ruoan ennakointiaktiivisuutta ja c-Fos-ilmentymistä aivojen palkkioalueilla. Neuroscience. 2005; 133 (1): 293-303. [PubMed]
8. Schroeder BE, Binzak JM, Kelley AE. Yhteinen profiili prefrontaalisesta kortikaalisesta aktivoinnista, joka seuraa altistumista nikotiini- tai suklaapohjaiseen kontekstiin. Neuroscience. 2001; 105 (3): 535-45. [PubMed]
9. Nestler EJ, Barrot M, Self DW. DeltaFosB: kestävä molekyylikytkin riippuvuutta varten. Proc Natl Acad Sci US A. 2001, 98 (20): 11042 – 6. [PMC vapaa artikkeli] [PubMed]
10. Teegarden SL, Bale TL. Ruokavalion mieluummin väheneminen lisää lisääntyvää emotionaalisuutta ja riskiä ruokavalion uusiutumiselle. Biol Psychiatry. 2007; 61 (9): 1021-9. [PubMed]
11. Olausson P, Jentsch JD, Tronson N, Nestler EJ, Taylor JR. dFosB Nucleus Accumbensissa säätelee elintarvikkeiden vahvistamaa instrumentaalikäyttäytymistä ja motivaatiota. Neurotieteen lehti. 2006; 26 (36): 9196-9204. [PubMed]
12. Chen J, Kelz MB, Zeng G, Sakai N, Steffen C, Shockett PE, Picciotto MR, Duman RS, Nestler EJ. Transgeeniset eläimet, joilla on indusoituva, kohdennettu geeniekspressio aivoissa. Mol Pharmacol. 1998; 54 (3): 495-503. [PubMed]
13. Kelz MB, Chen J, Carlezon WA, Jr, Whisler K, Gilden L, Beckmann AM, Steffen C, Zhang YJ, Marotti L, Self DW, Tkatch T, Baranauskas G, Surmeier DJ, Neve RL, Duman RS, Picciotto MR, Nestler EJ. Transkriptiotekijän deltaFosB: n ilmentyminen aivoissa kontrolloi herkkyyttä kokaiinille. Nature. 1999; 401 (6750): 272-6. [PubMed]
14. Bale TL, Dorsa DM. Estrogeenin sukupuolierot ja vaikutukset oksitosiinireseptorin messenger-ribonukleiinihapon ilmentymiseen ventromediaalisessa hypotalamuksessa. Endokrinologia. 1995; 136 (1): 27-32. [PubMed]
15. Avena NM, Long KA, Hoebel BG. Sokerista riippuvaisilla rotilla on parannettu vaste sokerille pidättymisen jälkeen: todisteet sokeripitoisuuden vaikutuksesta. Physiol Behav. 2005; 84 (3): 359-62. [PubMed]
16. Will MJ, Franzblau EB, Kelley AE. Nucleus accumbens mu-opioidit säätelevät runsaasti rasvaa sisältävän ruokavalion antamista hajautetun aivoverkon aktivoinnin kautta. J Neurosci. 2003; 23 (7): 2882-8. [PubMed]
17. Zheng H, Patterson LM, Berthoud HR. Orexin-signalointi ventral tegmental -alueella on välttämätöntä korkean rasvan omaavan ruokahalun aikaansaamiseksi, joka aiheutuu ydinakumien opioidien stimuloinnista. J Neurosci. 2007; 27 (41): 11075-82. [PubMed]
18. Hommel JD, Trinko R, Sears RM, Georgescu D, Liu ZW, Gao XB, Thurmon JJ, Marinelli M, DiLeone RJ. Leptiinireseptorin signalointi keskipitkän dopamiinin hermosoluissa säätelee ruokintaa. Neuroni. 2006; 51 (6): 801-10. [PubMed]
19. Colby CR, Whisler K, Steffen C, Nestler EJ, Self DW. DeltaFosB: n voimakas solutyyppispesifinen yli-ilmentyminen lisää kokaiinin kannustimia. J Neurosci. 2003; 23 (6): 2488-93. [PubMed]
20. Zachariou V, Bolanos CA, Selley DE, Theobald D, Cassidy MP, Kelz MB, Shaw-Lutchman T, Berton O, Sim-Selley LJ, Dileone RJ, Kumar A, Nestler EJ. DeltaFosB: n olennainen rooli morfiinitoiminnassa olevissa ytimissä. Nat Neurosci. 2006; 9 (2): 205-11. [PubMed]
21. Lee KW, Kim Y, Kim AM, Helmin K, Nairn AC, Greengard P. Kokaiinin aiheuttama dendriittisen selkärangan muodostuminen D1- ja D2-dopamiinireseptoripitoisissa keskipitkissä piikkisolmuissa ytimessä. Proc Natl Acad Sci US A. 2006, 103 (9): 3399 – 404. [PMC vapaa artikkeli] [PubMed]
22. Blendy JA, Maldonado R. Huumeiden väärinkäytön geneettinen analyysi: cAMP-vaste-elementin sitoutuvan proteiinin rooli. J Mol Med. 1998; 76 (2): 104-10. [PubMed]
23. Nestler EJ. Huumeriippuvuuden molekyylimekanismi Neuropharmacology. 2004, 47 1: 24 – 32. [PubMed]
24. Tanis KQ, Duman RS, Newton SS. CREB-sidonta ja aktiivisuus aivoissa: alueellinen spesifisyys ja induktio sähköiskun takavarikoinnilla. Biol Psychiatry. 2007
25. Kumar A, Choi KH, Renthal W, Tsankova NM, Theobald DE, Truong HT, Russo SJ, Laplant Q, Sasaki TS, Whistler KN, Neve RL, Self DW, Nestler EJ. Kromatiinin uudelleenmuotoilu on keskeinen mekanismin taustalla oleva mekanismi, joka perustuu striatumiin. Neuroni. 2005; 48 (2): 303-14. [PubMed]
26. Graham DL, Edwards S, Bachtell RK, Dileone RJ, Rios M, Self DW. Dynaaminen BDNF-aktiivisuus kokaiinikäytössä olevissa ytimissä lisää itsensä antamista ja uusiutumista. Nat Neurosci. 2007; 10 (8): 1029-37. [PubMed]
27. Svenningsson P, Nairn AC, Greengard P. DARPP-32 välittää useiden huumeiden väärinkäyttöä. Aaps J. 2005, 7 (2): E353 – 60. [PMC vapaa artikkeli] [PubMed]
28. Palmer AA, Verbitsky M, Suresh R, Kamens HM, Reed CL, Li N, Burkhart-Kasch S, McKinnon CS, Belknap JK, Gilliam TC, Phillips TJ. Geenin ilmentymiserot hiirissä, jotka on valittu poikkeavasti metamfetamiinin herkkyydelle. Mamm Genome. 2005; 16 (5): 291-305. [PubMed]
29. Bogush A, Pedrini S, Pelta-Heller J, Chan T, Yang Q, Mao Z, Sluzas E, Gieringer T, Ehrlich ME. AKT ja CDK5 / p35 välittävät DARPP-32: n aivosta johdettua neurotrofista tekijän induktiota keskisuurissa spiny-neuroneissa in vitro. J. Biol. Chem. 2007; 282 (10): 7352-9. [PubMed]
30. Benavides DR, Bibb JA. Cdk5in rooli huumeiden väärinkäytössä ja plastisuudessa. Ann NY Acad Sci. 2004, 1025: 335-44. [PubMed]
31. Bibb JA, Chen J, Taylor JR, Svenningsson P, Nishi A, Snyder GL, Yan Z, Sagawa ZK, Ouimet CC, Nairn AC, Nestler EJ, Greengard P. Kroonisen altistumisen vaikutuksia kokaiiniin säätelee neuroniproteiini Cdk5. Nature. 2001; 410 (6826): 376-80. [PubMed]
32. Blochl A, Sirrenberg C. Neurotropiinit stimuloivat dopamiinin vapautumista rotan mesenkefaalisista neuroneista Trk- ja p75Lntr-reseptorien kautta. J. Biol. Chem. 1996; 271 (35): 21100-7. [PubMed]
33. Berton O, McClung CA, Dileone RJ, Krishnan V, Renthal W, Russo SJ, Graham D, Tsankova NM, Bolanos CA, Rios M, Monteggia LM, Self DW, Nestler EJ. BDNF: n olennainen rooli mesolimbisessa dopamiiniradassa sosiaalisen tappion stressiä. Science. 2006; 311 (5762): 864-8. [PubMed]
34. Nestler EJ, Carlezon WA., Jr Mesolimbinen dopamiinin palkitsemispiiri masennuksessa. Biol Psychiatry. 2006; 59 (12): 1151-9. [PubMed]
35. Ford CP, Beckstead MJ, Williams JT. Somatodendriittisten dopamiinia inhiboivien postsynaptisten virtojen kappa-opioidien esto. J Neurophysiol. 2007; 97 (1): 883-91. [PubMed]
36. Nylander I, Vlaskovska M, Terenius L. Aivadynorfiini- ja enkefaliinijärjestelmät Fischerissä ja Lewis-rotissa: morfiinin toleranssin ja vetäytymisen vaikutukset. Brain Res. 1995; 683 (1): 25-35. [PubMed]
37. Nylander I, Hyytia P, Forsander O, Terenius L. Alkoholipitoisten (AA) ja alkoholin välttävien (ANA) rottien väliset erot prodynorfiini- ja proenkefaliinijärjestelmissä. Alkoholi Clin Exp Res. 1994; 18 (5): 1272-9. [PubMed]
38. Kreek MJ. Kokaiini, dopamiini ja endogeeninen opioidijärjestelmä. J Addict Dis. 1996; 15 (4): 73-96. [PubMed]
39. Carlezon WA, Jr, Duman RS, Nestler EJ. CREB: n monet kasvot. Trendit Neurosci. 2005; 28 (8): 436-45. [PubMed]
40. Dudman JT, Eaton ME, Rajadhyaksha A, Macias W, Taher M, Barczak A, Kameyama K, Huganir R, Konradi C. Dopamiini D1-reseptorit välittävät CREB-fosforylaatiota NMDA-reseptorin fosforylaation kautta Ser897-NR1: ssa. J Neurochem. 2003; 87 (4): 922-34. [PubMed]
41. Itse DW. Huumeidenkäytön ja -käyttäytymisen säätäminen neuroadaptoinneilla mesolimbisessa dopamiinijärjestelmässä. Neuropharmacology. 2004, 47 1: 242 – 55. [PubMed]
42. Beitner-Johnson D, Nestler EJ. Morfiini ja kokaiini aiheuttavat yleisiä kroonisia vaikutuksia tyrosiinihydroksylaasiin dopaminergisten aivojen palkitsemisalueilla. J Neurochem. 1991; 57 (1): 344-7. [PubMed]
43. Lu L, Grimm JW, Shaham Y, Hope BT. Molekulaariset neuroadaptatiot accumbens- ja ventral tegmental -alueilla ensimmäisten 90-päivien aikana, kun koiran itsensä antaminen pakotettiin pidättymään rotista. J Neurochem. 2003; 85 (6): 1604-13. [PubMed]
44. Shepard JD, Chuang DT, Shaham Y, Morales M. Metamfetamiinin itsensä antamisen vaikutus tyrosiinihydroksylaasi- ja dopamiinitransporteritasoihin rotan mesolimbisissa ja nigrostriaalisissa dopamiinireiteissä. Psykofarmakologia (Berl) 2006, 185 (4): 505 – 13. [PubMed]
45. Fulton S, Pissios P, Manchon RP, Stiles L, Frank L, Pothos EN, Maratos-Flier E, Flier JS. Mesoaccumbens-dopamiinireitin säätely Leptiini. Neuroni. 2006; 51 (6): 811-22. [PubMed]
46. Narita M, Nagumo Y, Miyatake M, Ikegami D, Kurahashi K, Suzuki T. Proteiinikinaasi C: n vaikutus oreksiinin indusoimaan solunulkoisen dopamiinitason nousuun ja sen palkitseva vaikutus. Eur J Neurosci. 2007; 25 (5): 1537-45. [PubMed]
47. Narita M, Nagumo Y, Hashimoto S, Khotib J, Miyatake M, Sakurai T, Yanagisawa M, Nakamachi T, Shioda S, Suzuki T. Suora osallistuminen oreksinergisiin järjestelmiin mesolimbisen dopamiinireitin aktivoitumiseen ja siihen liittyvät morfiinin aiheuttamat käyttäytymiset. J Neurosci. 2006; 26 (2): 398-405. [PubMed]
48. Borgland SL, Taha SA, Sarti F, Fields HL, Bonci A. Orexin A VTA: ssa on kriittinen synaptilisen plastisuuden ja käyttäytymisen herkistymisen aikaansaamiseksi kokaiinille. Neuroni. 2006; 49 (4): 589-601. [PubMed]
49. Park ES, Yi SJ, Kim JS, Lee HS, Lee IS, Seong JK, Jin HK, Yoon YS. Muutokset orexin-A: ssa ja neuropeptidi Y: n ilmentymisessä paasto- ja runsaasti rasvaa sisältävien ruokavalion rottien hypotalamuksessa. J Vet Sci. 2004; 5 (4): 295-302. [PubMed]
50. Wortley KE, Chang GQ, Davydova Z, Leibowitz SF. Peptidit, jotka säätelevät ruokaa: oreksiinigeenin ilmentyminen lisääntyy hypertriglyseridemian tiloissa. Am J Physiol Regul Integr Comp Physiol. 2003; 284 (6): R1454-65. [PubMed]
51. Zheng H, Corkern M, Stoyanova I, Patterson LM, Tian R, Berthoud HR. Elintarvikkeiden saantia säätelevät peptidit: ruokahalua aiheuttavat accumbens-manipulaatiot aktivoivat hypotalamuksen oreksiinin neuroneja ja inhiboivat POMC-neuroneja. Am J Physiol Regul Integr Comp Physiol. 2003; 284 (6): R1436-44. [PubMed]
52. Baldo BA, Gual-Bonilla L, Sijapati K, Daniel RA, Landry CF, Kelley AE. Orexin / hypocretinia sisältävien hypotalamuksen hermosolujen alipopulaation aktivointi GABAA-reseptorivälitteisellä ydin accumbens-kuoren estämisellä, mutta ei altistamalla uudelle ympäristölle. Eur J Neurosci. 2004; 19 (2): 376-86. [PubMed]
53. Harris GC, Wimmer M, Aston-Jones G. Rooli lateraalisten hypotalamuksen oreksiinien neuroneille palkitsemisessa. Nature. 2005; 437 (7058): 556-9. [PubMed]