Neurosci Biobehav Rev. 2011. január;35(3):939-55. doi: 10.1016/j.neubiorev.2010.10.014. Epub 2010. november 2.
- 1Bernard B. Brodie Idegtudományi Tanszék, Cagliari Egyetem, Cittadella Universitaria, 09042 Monserrato, CA, Olaszország. [e-mail védett]
ABSZTRAKT
Az oxitocin a pénisz erekciójának erős induktora, amikor a központi idegrendszerbe injektálják. A hím patkányoknál az oxitocin pro-erektív hatásának legérzékenyebb agya a hypothalamus paraventricularis magja. Ez a mag és a környező régiók tartalmazzák az oxitocinerg neuronok sejtjeit, amelyek az hypothalamikus agyterületekre és a gerincvelőre hatnak. Ez a felülvizsgálat azt mutatja, hogy az oxitocin az ilyen területeken (például ventrális tegmentális területen, a hippocampus ventrális szubikulusában, az amygdala és a toraco-lumbális gerincvelőben a hippocampus ventrális alsó részében) indukál. A mikroinjekciós vizsgálatok az agyi mikrodialízissel és a kettős immunfluoreszcens vizsgálatokkal együtt azt sugallják, hogy ezeken a területeken az oxitocin közvetlenül vagy közvetve (főleg glutaminsavon keresztül) aktiválódik a mezolimbikus dopaminerg neuronokkal. A sejtmagban felszabaduló dopamin viszont aktiválja a neurális útvonalakat, ami a paraventricularis magban az incerto-hypothalamikus dopaminerg neuronok aktiválásához vezet. Ez nemcsak az oxitocinerg neuronokat aktiválja, amelyek a gerincvelőre vetítenek, hanem a pénisz erekcióját közvetítik, hanem azokat is, amelyek a fenti hypothalamikus területekre vetítenek, közvetlenül vagy közvetve (glutaminsavon keresztül) befolyásolják a motivációt és jutalmat szabályozó mesolimbikus dopaminerg neuronok aktivitását. Ezek a neurális útvonalak együttesen egy komplex hipotetikus áramkört képezhetnek, amely nemcsak a szexuális aktivitás (erekciós funkció és kopuláció) fogyasztó fázisában játszik szerepet, hanem a szexuális viselkedés előrejelző szakaszának motiváló és jutalmazó aspektusaiban is.
1.Introduction
A pénisz erekciója egy férfi szexuális válasz, amely kulcsszerepet játszik az emlősök, köztük az ember szaporodásában, és amely a szigorúan véve a reprodukcióval kapcsolatosaktól eltérő kontextusokban is megfigyelhető. Attól függően, hogy milyen kontextusban történik a pénisz erekciója, különböző központi és perifériás idegi és/vagy humorális mechanizmusok vesznek részt a szabályozásában (lásd Meisel és Sachs, 1994; Argiolas és Melis, 1995, 2004, 2005; Sachs, 2000, 2007; McKenna, 2000; Giuliano és Rampin, 2000, 2004; Andersson, 2001; Melis és Argiolas, 1995a, 2003; Hull et al., 2002). A pénisz erekcióját szabályozó központi neurotranszmitterek és neuropeptidek közül a legismertebbek a dopamin, a szerotonin, az ingerlő aminosavak, a nitrogén-monoxid, az adrenokortikotropin, az oxitocin és az opioid peptidek . Több agyterületen is hatnak, például a mediális preoptikus területen, a hipotalamusz paraventrikuláris magjában, a ventrális tegmentális területen, a hippocampusban, az amigdalában, a stria terminalis magjában, a nucleus accumbensben, a velőállományban és a gerincvelőben (1. táblázat) (lásd Meisel és Sachs, 1994; Witt és Insel, 1994; Stancampiano és munkatársai, 1994; Argiolas és Melis, 1995, 2005; Argiolas, 1999; Bancila és munkatársai, 2002; Giuliano és Rampin, 2000, McKenna, 2000; Andersson, 2001; Hull és munkatársai, 2002; Coolen és munkatársai, 2004).
Az oxitocin, a laktációban és a szülés során hormonális szerepéről ismert neurohypofizál peptid, a nők és a férfiak esetében nemcsak a neurohypofízisre vetítő hipotalamusz paraventricularis és supraopticus magjaiban található sejttestekkel rendelkező neuronokban van jelen, hanem a neuronok kiváltó neuronjaiban is. a paraventricularis magból és a környező struktúrákból az extrahypothalamicus agyterületekre (azaz a septumra, a ventralis tegmentális területre, a hippocampusra, az amygdala-ra, a medulla oblongatára és a gerincvelőre). Úgy gondolják, hogy ezek a neuronok részt vesznek számos központi funkcióban, mint például a memória, a tanulás, az affiliatív és a társadalmi-szexuális viselkedés, beleértve a pénisz erekcióját és a kopulációs viselkedést (lásd Buijs, 1978; Sofroniew, 1983; Argiolas és Gessa, 1991; Pedersen és mtsai. 1992, Carter, 1992, Wagner és Clemens, 1993, Ivell és Russel, 1995, Carter és munkatársai, 1997, Tang és munkatársai, 1998, Veronneau-Longueville és munkatársai, 1999). Valójában az oxitocin megkönnyíti az erekciós funkciót és a férfiak szexuális viselkedését egerekben, patkányokban, nyulakban és majmokban (lásd Argiolas és Gessa, 1991; Carter, 1992; Pedersen és munkatársai, 1992; Argiolas és Melis, 1995, 2004; Argiolas, 1999, 1987; Argiolas, 1987). Ez embereknél is előfordulhat, mivel a plazma-oxitocint fokozza a szexuális ingerek, különösen az ejakuláció során (Carmichael és mtsai, 1974; Murphy és mtsai, XNUMX), valamint a mell és a nemi szervek manipulálása, amelyek általában szexuális úton fordulnak elő. közösülés (Tindall, XNUMX).
Az oxitocin férfiak szexuális viselkedésére gyakorolt megkönnyítő hatását először az intravénás oxitocin azon képessége bizonyította, hogy csökkenti az első ejakuláció késleltetését, és visszaszorítja a férfias nyulak fogamzóképes nővel (Melin és Kihlstrom, 1963) párosított szexuális kimerülését. Az oxitocin szexuális hatásait azonban csak a nyolcvanas években állapították meg. A centrálisan nanogrammban beadott oxitocint ezután sikerült a pénisz erekcióját kiváltani (Argiolas et al., 1985, 1986) és javítani a kopulációs viselkedést (Arletti et al., 1985) hím patkányokban, és növelni a lordózist nőstény patkányokban (Arletti és Bertolini, 1985; Caldwell és munkatársai, 1986), nyilvánvalóan a méh típusú oxitocinerg receptorokra hatva (lásd Argiolas és Melis, 1995, 2004; Argiolas, 1999; Melis és Argiolas, 2003; Az oxitocin nemcsak a szexuálisan hatásos hím patkányoknál (Arletti et al., 1985), hanem az idős hím patkányokban (Arletti és mtsai, 1990), valamint domináns, de nem alárendelt hím mókus majmokban (Winslow és Insel) javítja a szexuális viselkedést. , 1991).
Az oxitocin pro-erekciós hatása tesztoszteronfüggő, mivel a hipofízis eltávolításával és kasztrációval megszűnik, majd helyreáll tesztoszteron vagy metabolitjainak, az ösztradiolnak és az 5-dihidrotesztoszteronnak az együttes adagolásával (Melis et al., 1994a). Az oxitocin által kiváltott péniszerekció szempontjából a legérzékenyebb agyterület a hipotalamusz paraventrikuláris magja (Melis et al., 1986), ahonnan az összes extrahypothalamikus oxitocinerg projekció származik (lásd fent). Itt kimutatták, hogy az oxitocin már 3 pmol dózisban is képes péniszerekciót (és ásítást) kiváltani (lásd a 2.1. szakaszt alább). Az oxitocin péniszerekciót indukált, ha kétoldali injekcióban a hippocampus CA1 mezőjébe adták be, de nem a dorzális subiculumba (lásd a 2.3. szakaszt alább), a laterális septumba, a farokmagba, a mediális preoptikus területre, a hipotalamusz ventromediális magjába és a supraoptikus magba (Melis et al., 1986). Ami az oxitocin paraventrikuláris magban kifejtett hatását illeti, amely szexuális választ vált ki, számos tanulmány arra utal, hogy az oxitocin saját neuronjait aktiválja. Ezzel a hipotézissel összhangban a szexuális interakció növeli az FOS-t, a gerincvelőbe vetülő paraventrikuláris oxitocinerg neuronokban található azonnali korai c-fos gén géntermékét, amelyek részt vesznek a pénisz erekciójának szabályozásában (lásd Witt és Insel, 1994 és az ott található hivatkozások), és a szexuális impotenciát (pl. egy felnőtt hím patkány képtelensége párosodni egy ovariektomizált ösztrogén-progeszteron-előmelegített receptív nősténnyel) a hím patkányoknál az oxitocin mRNS alacsony szintjével hozták összefüggésbe a hipotalamusz paraventrikuláris magjában (Arletti et al., 1997).
Jelenleg nem tisztázott, hogy az oxitocin a szexuális viselkedés anticipációs vagy konszumatív fázisát befolyásolja-e . Mivel az oxitocin pénisz erekciót okoz, és az oxitocin fő hatása a kopulációs viselkedésre a posztejakulációs intervallum csökkentése hím patkányokban (Arletti et al., 1985), ésszerű feltételezni, hogy a peptid javítja a szexuális teljesítményt. Mivel azonban az oxitocin a szocio-szexuális interakciót is fokozza (lásd Pedersen et al., 1992; Carter et al., 1997; Ivell és Russel, 1995), és az oxitocin receptor antagonisták megakadályozzák az érintkezés nélküli erekciót (Melis et al., 1999a), amelyet a szexuális izgalom indexének tekintenek (lásd Sachs, 1997, 2000, 2007; Melis et al., 1998, 1999b és az ott található hivatkozások), az oxitocin lehetséges szerepe a szexuális izgalomban és a szexuális motivációban nem zárható ki.
Ez az áttekintés összefoglalja a friss tanulmányok publikált és nem publikált eredményeit, amelyek kimutatták, hogy az oxitocin nemcsak a hipotalamusz paraventrikuláris magjába injektálva okoz pénisz erekciót, hanem más, hipotalamuszon kívüli agyterületeken is, például a ventrális tegmentális területen (Melis et al., 2007, 2009a; Succu et al., 2008), a hippocampus ventrális szubikulumában és az amygdala hátsó magjában (Melis et al., 2009b, 2010), amelyek a limbikus rendszer fontos alkotóelemei, és amelyekről úgy gondolják, hogy kulcsszerepet játszanak a motivációs és jutalmazási folyamatokban. Ezek a tanulmányok kimutatták, hogy az oxitocin részt vesz az idegi áramkörökben, amelyek más neurotranszmittereket is magukban foglalnak, mint például a dopamin és a glutaminsav, valamint a paraventrikuláris magon kívüli más agyterületeken, pl. a ventrális tegmentális területen, a nucleus accumbensben, a hippocampusban és még azonosítatlan területeken. Ezek az idegpályák valószínűleg közvetítik a mezolimbikus és az incerto-hipotalamusz dopaminerg rendszer közötti kölcsönhatást, és nemcsak a férfi szexuális viselkedés beteljesülési fázisában (pl. pénisz erekció és közösülés) játszanak szerepet, hanem a szexuális motivációban és a szexuális izgalomban is, így neurális szubsztrátot biztosítanak a szexuális tevékenység motivációs és jutalmazó tulajdonságainak magyarázatához.
2. Az oxitocin befolyásolja a pénisz erekcióját azáltal, hogy különböző agyterületeken hat
2.1. A hypothalamus paraventricularis magja
Amint a fentiekre emlékeztettünk, a hypothalamus paraventricularis magját hamarosan az oxitocin pro-erektilis hatására legérzékenyebb agyi területként azonosították. Amikor az oxitocint egyoldalúan injektáltuk a sejtmagba, az 3 ng (3 pmol) (Melis és munkatársai, 1986) olyan alacsony dózisokban volt aktív. A struktúra-aktivitás összefüggés vizsgálatok azt mutatták, hogy az oxitocin által kiváltott pénisz erekciót uterinetype-oxitocin receptorok közvetítették, az oxitocinerg idegsejtek sejtjeiben Ca2 + beáramlással összekapcsolva, és a nitrogén-oxid szintetáz aktiválásához. A nitrogén-oxid viszont egy még ismeretlen mechanizmussal intracelluláris messengerként hat (nem a guanilát-ciklázzal), ami a gerincvelőbe és az extra-hypothalamikus agyterületekre vetítő oxitocinerg neuronok aktiválódásához vezet, ami pénisz erekciót indukál (1). és Argiolas és Melis, 1995, 2004, 2005 és az ott található hivatkozások). Az oxitocin saját neuronjainak aktiválásának képessége
1. (MISSING) Az oxitocinerg neuronok sematikus ábrázolása, amelyek a hypothalamus paraventricularis magjából származnak, és a hipotalámiás agyterületekre, például a gerincvelőre, a VTA-ra, a hippocampusra, az amygdala-ra stb. A dopamin, az excitáló aminosavak, az oxitocin, a hexarelin analóg peptidek és a VGF-eredetű peptidek a pénisz erekciójához vezetnek, amely csökkenthető és / vagy megszűnik a GABAerg, opioid és kannabinoid CB1 receptorok stimulálásával. Az oxitocinerg neuronok aktiválása másodlagos a nitrogén-monoxid-szintáz aktivációjához. Valójában az endogén nitrogén-monoxid, amelyet a dopamin, excitáló aminosav vagy oxitocin receptorok vagy exogén nitrogén-oxid stimulálásával képeznek, mint a nitrogén-monoxid donorokból származó, közvetlenül a paraventricularis magba, az oxitocinerg neuronokat egy még nem azonosított mechanizmussal aktiválja, amely nyilvánvalóan nem kapcsolódik a \ t guanilát-cikláz stimulálása. Ez viszont okozza az oxitocin felszabadulását a gerincvelőben és az extra-hypothalamikus agyterületeken. Néhány részletet a mechanizmusokról, amelyek révén az oxitocin a pénisz erekcióját idézi elő ezeken a területeken, például a VTA, a ventralis aliculum és az amygdala, a megfelelő agyterület-szakaszokban ismertetjük. Itt az oxitocin a saját receptoraira hat, és növeli a NO-termelést, ami a péniszben található erekcióhoz vezet. A PVN-val ellentétben azonban a caudális VTA NO aktiválja a guanilát-ciklázt. Ez a cGMP-koncentráció növekedését okozza, ami a mezolimbikus dopaminerg neuronok aktiválásához és a pénisz erekciójához vezet. A VS NO aktiválja a glutamatergikus neuronokat, amelyek a hippocampális területekre vetítenek, beleértve a VTA-t is. A glutaminsav a VTA-ban aktiválódik a mesolimbikus dopaminerg neuronokkal, amint azt az oxitocinnal találták. A fentebb leírtakhoz hasonló mechanizmusok valószínűleg akkor is működnek, ha a pénisz erekciója fiziológiás kontextusban történik, nevezetesen akkor, amikor a hím patkányokat nem hozzáférhető fogamzásgátló női jelenlétében helyezik el (pl. Nem érintkező erekció) vagy a kopuláció során.
A paraventrikuláris magban található oxitocin receptorok jelenlétét olyan tanulmányok támasztották alá, amelyek kimutatták, hogy: (1) oxitocin receptorok vannak jelen ebben a hipotalamusz magban (Freund-Mercier et al., 1987; Freund-Mercier és Stoeckel, 1995); (2) az oxitocin elősegíti saját felszabadulását in vitro és in vivo (Freund-Mercier és Richard, 1981, 1984; Moos et al., 1984); és (3) az oxitocin gerjeszti saját neuronjait a paraventrikuláris magban hatva (Yamashita et al., 1987). Ezenkívül a hipotalamusz paraventrikuláris és supraoptikus magjában is azonosítottak oxitocinerg szinapszisokat, amelyek a magnocelluláris oxitocinerg neuronok sejttesteire hatnak (Theodosis, 1985). Végül a központi oxitocinerg neuronok pusztulása a paraventrikuláris mag elektrolitikus vagy kémiai excitotoxikus léziói által, amely teljesen kimeríti az oxitocin-tartalmat a központi idegrendszerben és a gerincvelőben, nemcsak az oxitocin pro-erekciós hatását szünteti meg, hanem rontja a gyógyszer által kiváltott pénisz erekciót és az érintkezés nélküli erekciót is (lásd alább, valamint Argiolas et al., 1987a,b; Liu et al., 1997 és az ott található hivatkozások). A paraventrikuláris mag lézióinál tapasztaltakhoz hasonló eredményeket kaptunk erős és szelektív oxitocinreceptor-antagonistákkal is. Valójában ezek a vegyületek nanogrammos mennyiségben a paraventrikuláris magba injektálva teljesen megakadályozták az oxitocin által kiváltott péniszmerevedést, míg az oldalsó kamrákba adva nemcsak az oxitocin által kiváltott péniszmerevedést akadályozták meg, hanem a gyógyszer által kiváltott péniszmerevedést is (lásd a 3. szakaszt alább, valamint Argiolas és Melis, 1995, 2004, 2005 és az ott található hivatkozásokat), valamint az érintkezésmentes erekciót (Melis et al., 1999a), sőt rendkívül hatékonyak voltak a szexuálisan potenciálra képes hím patkányok kopulációs viselkedésének károsodásában (Argiolas et al., 1988). Továbbá a szexuális interakció növeli az FOS-t, a gerincvelőbe vetülő, a péniszmerevedés szabályozásában részt vevő paraventrikuláris oxitocinerg neuronokban található azonnali korai c-fos gén géntermékét (lásd Witt és Insel, 1994 és az ott található hivatkozásokat). Végül, a szexuális impotencia (pl. egy felnőtt hím patkány képtelensége párosodni egy ösztrogén-progeszteron-függő, fogékony nősténnyel) szintén összefüggésbe hozható hím patkányoknál az oxitocin mRNS és a nitrogén-monoxid-szintáz alacsony szintjével a hipotalamusz paraventrikuláris magjában (Benelli et al., 1995; Arletti et al., 1997) (e tanulmányok átfogó áttekintését lásd Argiolas, 1999; Argiolas és Melis, 2004, 2005).
2.2. A ventrális tegmentális terület
A ventrális tegmentális területet csak a közelmúltban fedezték fel, mint az agy azon területét, ahol az oxitocin a pénisz erekcióját idézi elő . Ez a terület oxitocinerg idegvégződéseket tartalmaz, amelyek a paraventrikuláris magból és az oxitocin receptorokból erednek (Freund-Mercier et al., 1987; Vaccari et al., 1998). Pontosabban, az oxitocin képesnek bizonyult a pénisz erekciójának kiváltására, ha egyoldalilag a kaudális, de nem a rostralis ventrális tegmentális területre injektálják dózisfüggő módon (Melis et al., 2007). Az aktív dózisok magasabbak voltak, mint amilyenek a paraventrikuláris magba injektálva szükségesek voltak, és hasonlóak voltak azokhoz, amelyek pénisz erekciót váltottak ki, ha a hippocampus ventrális subiculumba vagy az amygdala posteromediális kortikális magjába injektálták (lásd alább). Úgy tűnik, hogy az erekciót elősegítő hatást a nucleus accumbens héjába vetülő mezolimbikus dopaminerg neuronok aktiválása közvetíti, ami viszont olyan eddig ismeretlen idegi pályákat aktivál, amelyek az incerto-hypothalamus dopaminerg neuronjaihoz vetülnek, és ezáltal a pénisz erekcióját közvetítő paraventrikuláris oxitocinerg neuronokra hatnak (Melis et al., 2007, 2009a).
Ami azt a mechanizmust illeti, amellyel az oxitocin aktiválja a dopaminerg neurotranszmissziót a ventrális tegmentális területen, a rendelkezésre álló adatok arra utalnak, hogy az oxitocin stimulálja a mezolimbikus dopaminerg neuronok sejtjeiben található oxitocinerg receptorokat. Ez növeli a Ca2+ beáramlást a dopaminerg neuronok sejtjeiben, ezáltal aktiválva a nitrogén-monoxid-szintázt (Succu et al., 2008). A paraventrikuláris maggal ellentétben (lásd a 3. szakaszt alább), a nitrogén-monoxid viszont aktiválja a guanilát-ciklázt, ezáltal növelve a ciklikus GMP koncentrációját. Ezzel a mechanizmussal összhangban, akár a d(CH2)5Tyr(Me)2-Orn8-vazotocin, egy erős oxitocin-antagonista, akár az S-metil-tio-l-citrullin, a neuronális nitrogén-monoxid-szintáz erős inhibitora, az oxitocin előtt a kaudális ventrális tegmentális területre injektálva megszüntette a pénisz erekcióját és az oxitocin által kiváltott extracelluláris dopaminkoncentráció-növekedést a nucleus accumbens héjában. Továbbá a 8-bróm-ciklusos GMP, egy aktív foszfodiészteráz-rezisztens ciklikus GMP analóg, pénisz erekciót okoz, amikor a caudalis ventrális tegmentális területre injektálják, és növeli az extracelluláris dopaminkoncentrációt a nucleus accumbens héjában, ahogyan azt a caudalis ventrális tegmentális területre injektált oxitocin esetében is megfigyelték (Succu et al., 2008; Melis et al., 2009a) (lásd még a 2. ábrát).
Ezzel a mechanizmussal összhangban a haloperidol, egy erős dopamin D2 receptor antagonista, a nucleus accumbens héjába injektálva csökkenti a ventrális tegmentális területre injektált oxitocin által kiváltott pénisz erekciót (Melis et al., 2007). A fenti mechanizmust kettős immunfluoreszcencia vizsgálatok is alátámasztják, amelyek azt mutatják, hogy az oxitocin rostok ütköznek a caudális ventrális tegmentális terület dopaminerg neuronjainak sejttestjeivel, amelyeket korábban a nucleus accumbens héjába injektált Fluorogold retrográd nyomjelzővel jelöltek (Melis et al., 2007; Succu et al., 2008). Ezen dopaminerg neuronok és a nucleus accumbensben található dopaminreceptorok aktiválódása viszont még azonosítatlan idegpályák aktiválódásához vezet, amelyek stimulálják az incerto-hypothalamusz dopaminerg neuronjait dopamin felszabadítására a paraventrikuláris magban, ezáltal aktiválva a gerincvelőbe kiálló oxitocinerg neuronokat, amelyek közvetítik a pénisz erekcióját (lásd fent, valamint Melis et al., 2007; Succu et al., 2007, 2008). Valójában a kaudális ventrális tegmentális területbe injektált oxitocin olyan dózisban, amely pénisz erekciót váltott ki, növelte az extracelluláris dopaminkoncentrációt a dializátumban, amelyet nemcsak a nucleus accumbensből, hanem a paraventrikuláris magból is nyertek (Succu et al., 2007).
2.3. A hippocampus
A hippocampus CA1 mezője volt a másik oxitocinerg rostokban és receptorokban gazdag agyterület, amelyet a korábbi, pénisz erekcióját kiváltó vizsgálatok azonosítottak (lásd Bujis, 1978; Sofroniew, 1983). A paraventrikuláris maggal ellentétben azonban itt az oxitocin csak akkor volt képes pénisz erekciót kiváltani, ha kétoldali injekcióban és nagyobb dózisban adták be, mint amilyeneket a paraventrikuláris magban aktívnak találtak (Melis et al., 1986; Chen et al., 1992). A szubikulumba injektált oxitocin inaktívnak bizonyult ezekben a korábbi vizsgálatokban. Azonban a legújabb és gondosabb mikroinjekciós vizsgálatok a ventrális szubikulum egy olyan régiójának azonosításához vezettek , amelyben az oxitocin injekciója dózisfüggő módon képes volt pénisz erekciót kiváltani (Melis et al., 2009b). Az ebbe az agyterületre injektált oxitocin pro-erekciós hatását hasonló dózisokban figyelték meg, mint amelyeket az egyoldali injekció után a ventrális tegmentális területen aktívnak találtak (Melis et al., 2007), ahogyan azt a paraventrikuláris magban is megfigyelték. Úgy tűnik, hogy a ventrális szubikulumba injektált oxitocin a nitrogén-monoxid-szintázt tartalmazó neuronokban található oxitocinerg receptorok aktiválásával indukálja a pénisz erekcióját, ami a nitrogén-monoxid-termelés növekedését okozza. A nitrogén-monoxid viszont intercelluláris hírvivőként működve aktiválja a glutaminsav neurotranszmisszióját, ami pénisz erekcióhoz vezet, valószínűleg a ventrális szubikulumból az extra-hippocampális agyterületekre irányuló neurális (glutamaterg) efferens nyúlványokon keresztül, modulálva a mezolimbikus dopaminerg neuronok (pl. a ventrális tegmentális terület, a prefrontális kéreg, a paraventrikuláris mag) aktivitását (lásd alább és Melis, 2007, 2009b; Succu et al., 2008).
Ezt a hatásmechanizmust az agyi mikrodialízis kísérletek alátámasztják, amelyek azt mutatják, hogy a ventralis aliculumba injektált oxitocin a pénisz erekcióját indukáló dózisokban növeli a nitrogén-monoxid-termelést és az extracelluláris glutaminsav-koncentrációt a ventrális szubiculum dializátumában (Melis et al. , 2010) és az extracelluláris dopamin a magban accumbensben (Melis és mtsai., 2007). Ezeket a válaszokat nemcsak az oxitocin receptor antagonista d (CH2) 5Tyr (Me) 2-Orn8-vazotocin, hanem a neuron nitrogén-oxid szintetáz inhibitora, az S-metil-tio-litritrin és a nitrogén-oxid-megkötő hemoglobin adta. néhány perccel az oxitocin előtt (Melis és munkatársai, 2010).
Továbbá, ezzel a hatásmechanizmussal összhangban, a ventrális szubikulumba injektált NMDA által aktivált glutamáterg neurotranszmisszió pénisz erekciót okoz (Melis et al., 2010). A ventrális szubikulumból kiinduló efferens projekciók fenotípusa, amely a mezolimbikus dopaminerg neuronok aktiválódását és az extracelluláris dopamin növekedését okozza a nucleus accumbensben, jelenleg nem ismert. Mivel azonban a ventrális szubikulumba injektált oxitocin által kiváltott péniszerekció egyidejűleg következik be a ventrális tegmentális területről származó extracelluláris glutaminsav növekedésével a dializátumban, de nem a nucleus accumbensből, és ezt antagonizálja a (+)MK-801, az NMDA altípusú serkentő aminosav-receptorok erős, nem kompetitív antagonistája (Woodruff et al., 1987), amelyet a ventrális tegmentális területre injektálnak, de nem a nucleus accumbensbe (lásd 2. ábra és Melis et al., 2009b), valószínű, hogy ezek a projekciók a glutamáterg neurotranszmisszió aktiválódásához vezetnek a ventrális tegmentális területen, ami viszont aktiválja a nucleus accumbensbe projicáló mezolimbikus dopaminerg neuronokat. Jelenleg nem ismert, hogy az oxitocin ventrális szubikulumba történő injekciója után a ventrális tegmentális területen található megnövekedett glutaminsav-koncentráció a szubikulumból vagy más agyterületekről (pl. a prefrontális kéregből) származó neuronokból szabadul-e fel. Ez mindazonáltal a mezolimbikus dopaminerg neuronok aktiválódását és fokozott dopaminfelszabadulást okoz a nucleus accumbensben . Itt a dopaminreceptorok aktiválódása az incerto-hypothalamusz dopaminerg neuronok aktiválódásához vezet, dopamint szabadítva fel a paraventrikuláris magban, ezáltal aktiválva a gerincvelőbe projicáló oxitocinerg neuronokat, és közvetítve a pénisz erekcióját (lásd fent, valamint Melis és munkatársai, 2007, 2009a; Succu és munkatársai, 2008).
2.4. Az amygdala
Az amygdala egy másik, oxitocinszálakban és receptorokban gazdag agyterület (lásd Freund-Mercier és munkatársai, 1987; Vaccari és munkatársai, 1998; Uhl-Bronner és munkatársai, 2005). Az oxitocin itt úgy gondoljuk, hogy különböző funkciókban, anxiolízisben, társadalmi emlékezetben és megismerésben, társadalmilag megerősített tanulásban, érzelmi empátiában, érzelmi arcfeldolgozásban és az erekciós funkcióra és a szexuális viselkedésre gyakorolt félelemben (lásd Kondo et al., 1998; Dominguez et aln., 2001; Ebner és munkatársai, 2005; Huber és munkatársai, 2005; Domes és munkatársai, 2007; Petrovic és munkatársai, 2008; Lee és munkatársai, 2009; Donaldson és Young, 2009; Hurlemann és mtsai. , 2010). Azonban az utóbbi időkben az oxigocinnak az amygdala posteromedialis kortikális magjában indukált hím patkányok pénisz erekciójának kiváltására való képességét találtuk meg (Melis et al., 2009b). Ez a válasz együttesen jelentkezett a sejten kívüli dopamin-koncentráció növekedésével a nukleáris accumbens héjából nyert dializátumban, amint azt az oxitocin injekcióba vitték a ventrális szubikulusba (Melis és munkatársai, 2009b). A mechanizmus, amellyel az amygdala posteromedialis kortikális magjába injektált oxitocin a pénisz erekcióját idézi elő, jelenleg ismeretlen. A rendelkezésre álló adatok azt mutatják, hogy mind a pénisz erekciója, mind a sejten kívüli dopamin koncentráció növekedése a nukleinsavból származó oxiocinerg receptorok aktiválásával történik, mivel mindkét választ megszüntette az oxitocin receptor antagonista d (CH2) 5Tyr ( Me) 2-Orn8-vazotocin az amygdala magba injektált néhány perccel az oxitocin előtt (Melis és mtsai., 2009b).
Bármilyen mechanizmust is aktivál az oxitocin az amygdala posteromediális kéregmagjában, a peptid által kiváltott szexuális választ a nucleus accumbens héjába injektált cisz-flupentixollal az összes dopaminerg receptor blokkolása, valamint az NMDA receptorok blokkolása a ventrális tegmentális területre injektált (+)MK-801-gyel, de nem a nucleus accumbensbe, ahogyan azt a ventrális subiculumba injektált oxitocin által kiváltott pénisz erekció esetében megfigyelték (Melis et al., 2009b). Ez arra utal, hogy az amygdala posteromediális magjába injektált oxitocin aktiválja a glutaminsav neurotranszmissziót a ventrális tegmentális területen. Ez viszont a mezolimbikus dopaminerg neuronok aktiválódását okozza, ami pénisz erekcióhoz vezet. Tekintettel az amygdala ezen magját a ventrális subiculummal összekötő idegpályákat mutató tanulmányokra (Canteras et al., 1995; French és Totterdell, 2003), ezek az eredmények felvetik annak lehetőségét, hogy kölcsönhatás állhat fenn e két agyterület között, bár leírtak már közvetlen utakat az amygdalából a nucleus accumbensbe vagy a ventrális tegmentális területre (Kelley és Domesick, 1982; Witter, 2006).
2.5. A gerincvelő
A gerincvelő a központi idegrendszer egy másik része, amely oxitocinerg szálakat és receptorokat tartalmaz (Freund-Mercier és mtsai, 1987; Uhl-Bronner és mtsai., 2005), amelyekben az oxitocin pénisz erekciót indukál (Tang et al., 1998 Veronneau-Longueville és munkatársai, 1999, Giuliano és Rampin, 2000, Giuliano és munkatársai, 2001). Amint fentebb említettük, ezek az oxitocinerg rostok a hipotalamusz paraventricularis magjából származnak, és hozzájárulnak a gerincvelői autonóm idegsejtek szabályozására a pénisz erekciójával. Valójában ezek a szálak szinaptikus érintkezéseket hoznak létre a hátsó kürt preganglionos szimpatikus és paraszimpatikus sejtoszlopaiban a toraco-lumbális és lumbo-sacralis traktusban a gerincvelői idegsejtet beidegző gerinc neuronokkal (Marson és McKenna, 1996; Giuliano és Rampin, 2000; Giuliano et al. , 2001). Ezeket a szinaptikus kontaktusokat a péniszből származó gerincvelői neuronok címkézésével és a gerincvelő specifikus retrográd nyomjelzőkkel, a kettős immunfluoreszcens és konfokális lézer mikroszkópiás vizsgálatokkal (Tang et al., 1998; Veronneau-Longueville et al., 1999). Ezekkel a vizsgálatokkal összhangban az érzéstelenített hím patkányokban az oxitocin kumulatív dózisainak intratekális injekciója a lumbo-sakrálisan, de nem a toraco-lumbális szinten, az intracavernikus nyomást dózisfüggő módon emelkedett. Ezeket a hatásokat az oxitocinerg receptor d (CH2) 5Tyr (Me) 2-Orn8-vazotocinnal és a kismedencei idegek blokkolásával (Giuliano és Rampin, 2000; Giuliano et al., 2001) megszüntették. Ezek az eredmények azt mutatják, hogy a lumbo-sakrális gerincvelőre ható oxitocin növeli az intracavernous nyomást, és arra utal, hogy a paraventricularis mag fiziológiás aktiválása során felszabaduló oxitocin a gerincprofektív neuronok aktiválója, amely a cavernous corpora-ra nyúlik ki. Érdekes, hogy ezek az erekciós gerinc-neuronok, amelyeken az oxitocin hatással van az erekciós hatására, szinaptikus kontaktusokat kapnak a medulla oblongata retikuláris képződésében lévő maradék paragigantocellularisból származó szerotoninerg neuronokból (Marson és McKenna, 1992; Tang et al. ., 1998). Ezeknek a szerotoninerg neuronoknak a megsemmisítése megkönnyíti az ejakulációt és a pénisz reflexeket hím patkányokban (Marson és McKenna, 1992; Yells et al., 1992). Mivel az 5HT2C receptorokat stimuláló gyógyszerek elősegítik a pénisz erekcióját, amikor intracerebroventrikulárisan, de nem a paraventricularis magba kerülnek, és olyan gyógyszerek, amelyek blokkolják az 5HT2C receptorokat, csökkentik a dopamin agonista és oxitocin által kiváltott pénisz erekciót, míg a dopamin antagonisták nem csökkentik az 5HT2C agonista által kiváltott pénisz erekcióját ( lásd Stancampiano és munkatársai, 1994 és hivatkozásai), azt is javasolta, hogy az oxitocin megkönnyíti a pro-erektilis 5HT2C receptorok hatását a lumbo-sakrális gerincvelő szintjén (Stancampiano et al., 1994). Alternatív megoldásként az oxitocin befolyásolhatja a gerincvelő szerotoninerg neuronok aktivitását közvetlenül a nucleus paragigantocellularisban, ahol ezek a neuronok származnak (lásd Stancampiano et al., 1994). Ezzel a lehetőséggel összhangban leírtak egy oxitocinerg útvonalat, amely a paraventrikuláris magból indul ki, és a medulla oblongatában található retikuláris formatio nucleus paragigantocellularisába jut (Bancila et al., 2002), és a gerincvelőben a dopamin- és oxitocinreceptorok után elhelyezkedő 5HT2C receptorok aktiválódását ezen vegyületek, sőt az ACTH-MSH peptidek erekciót elősegítő hatásának közös mechanizmusának tekintik (Kimura et al., 2008).
3. Az oxitocin, a dopamin és a glutaminsav kölcsönhatása a központi idegrendszerben és a pénisz erekciójában
Amint azt az 1. szakaszban felidéztük, a központi idegrendszerben jelen lévő összes oxitocinerg neuron a paraventrikuláris magból és a környező struktúrákból származik. Ezen neuronok aktivitását különböző neurotranszmitterek és/vagy neuropeptidek szabályozzák. A paraventrikuláris szinten a leggyakrabban vizsgált neuronok közé tartozik a dopamin, a glutaminsav, a gamma-aminovajsav (GABA), a nitrogén-monoxid, az endokannabinoidok, az opioid peptidek, a növekedési hormont felszabadító peptidek, a VGF-hez kapcsolódó peptidek és maga az oxitocin. A dopamin, a glutaminsav, a növekedési hormont felszabadító peptidek, a VGF-ből származó peptidek és az oxitocin stimuláló hatásúak, pl. ezek a vegyületek és agonistáik elősegítik a pénisz erekcióját, amikor a paraventrikuláris magba injektálják őket, míg a GABA, az opioid peptidek és az endokannabinoidok gátló hatásúak, pl. ezek a vegyületek vagy agonistáik gátolják a pénisz erekcióját (lásd Meisel és Sachs, 1994; Witt és Insel, 1994; Argiolas és Melis, 1995, 2004, 2005; Giuliano és Rampin, 2000, 2004; McKenna, 2000; Andersson, 2001; Hull et al., 2002).
A kísérleti bizonyítékok több sora arra utal, hogy ezek az oxitocinerg neuronok és a fenti neurotranszmitterek és neuropeptidek részt vesznek az erekciós funkció és a szexuális viselkedés szabályozásában különböző fiziológiai kontextusokban. Továbbá az extra-hypothalamikus agyterületeken felszabaduló oxitocin, mint például a ventrális tegmentális terület, a hippocampus és annak régiói, az amygdala és a gerincvelő befolyásolhatja azon neuronok aktivitását, amelyeken az oxitocinerg szinapszisok hatnak. Abban a pillanatban, az egyedüli neuronok, amelyek fontosak a pénisz erekciójához, amelyeken az oxitocinerg szinapszisok bizonyítottan azonosulnak, a caudalis ventrális tegmentális terület mesolimbikus dopaminerg neuronjainak sejtjei, amelyek a magok akumbens héjához nyúlnak ki (Melis et al., 2007 Succu és munkatársai, 2008), és az erekciós gerincvelői neuronok, amelyek a lumbo-sacralis traktusból a cavernous korona felé nyúlnak ki (lásd Giuliano és Rampin, 2000; Giuliano et al., 2001) (lásd még az 2.2 és 2.5 szekciókat) . Valóban, bár az oxitocinerg szinapszisokat és receptorokat is azonosították a ventralis aliculumban, az amygdalában és a gerincvelőben, olyan területeken, amelyek mind fontosak a pénisz erekciójához (lásd fent), ezeken a területeken a neuronok a neuronokban jelen vannak. az oxitocinerg idegvégződések még nem ismertek.
Az áttekintés ezen része röviden összefoglalja a kaudális ventrális tegmentális területbe, a hippocampus ventrális szubikulumába és a gerincvelőbe injektált oxitocin proerektilis hatásának mechanizmusairól szóló legújabb szakirodalmat. Különös figyelmet fordít a peptid dopaminnal és glutaminsavval való kölcsönhatására ezeken a területeken, valamint arra a szerepre, amelyet ez a kölcsönhatás az erekciós funkció központi szabályozásában játszhat. Először a dopamin és a glutaminsav paraventrikuláris magban található oxitocinerg neuronokra gyakorolt hatásának rövid összefoglalását adjuk meg, amelyek szintén kulcsszerepet játszanak az erekciós funkcióban, annak érdekében, hogy az olvasó tisztában legyen a terület kutatásának korai állapotával, mivel ezeket a tanulmányokat már széles körben áttekintették (lásd Argiolas és Melis, 1995, 2004, 2005; Melis és Argiolas, 2003). Ebben az esetben is különös figyelmet fordítunk a legfrissebb eredményekre, amelyek a dopamin-oxitocin és a glutaminsav-oxitocin kapcsolat fontos szerepére utalnak nemcsak a szexuális teljesítményben (pénisz erekciója és közösülése), hanem a szexuális izgalomban és a szexuális motivációban is.
3.1. Dopamin-oxitocin kölcsönhatás a paraventricularis magban
A dopaminagonisták azon képességét, hogy a központi oxitocinerg neuronok aktiválásával pénisz erekciót idézzenek elő , közvetlenül azután vetették fel, hogy felfedezték, hogy az apomorfin a paraventrikuláris magba injektálva pénisz erekciót okoz (Melis et al., 1987), amikor az oxitocin receptor antagonista d(CH2)5Tyr(Me)2-Orn8-vasotocin intracerebroventrikulárisan (icv) injektálva képesnek bizonyult szinte teljesen csökkenteni nemcsak az icv-ként adott oxitocin, hanem a szubkután adott apomorfin által kiváltott pénisz erekciót is (Argiolas et al., 1987b). Ezeket az eredményeket más, hasonló eredményeket mutató tanulmányok követték, amelyekben a d(CH2)5Tyr(Me)2-Orn8-vazotocint intraventrikulárisan, az apomorfint pedig közvetlenül a paraventrikuláris magba adták be (Melis et al., 1989b). Ez arra utal, hogy a dopamin agonisták a hipotalamuszon kívüli agyterületekre, és különösen a gerincvelőbe vetülő paraventrikuláris oxitocinerg neuronok aktiválásával indukálják a pénisz erekcióját (lásd Argiolas és Melis, 1995, 2004, 2005). Ezzel a hipotézissel összhangban, altatott patkányokban a lumbo-sacralis oxitocinerg receptorok nem peptid oxitocin receptor antagonistával történő blokkolása képes megszüntetni az apomorfin által kiváltott intrakavernózus nyomásemelkedést, amelyet a dopamin agonista apomorfin indukál, ami bizonyítékot szolgáltat a pénisz erekciójában részt vevő paraventrikuláris-spinális oxitocinerg útvonalra (Baskerville et al., 2009).
A pénisz erekciójának kiváltásáért felelős dopaminreceptor azonosítását célzó vizsgálatok kimutatták, hogy a paraventrikuláris magban is a dopaminreceptor agonisták a D2 családba tartozó dopaminreceptorokra hatva indukálják a pénisz erekcióját , ahogyan azt a szisztémásan adott dopaminreceptor agonisták esetében is megfigyelték (lásd Melis et al., 1987; Eaton et al., 1991; Melis és Argiolas, 1995a). Ennek megfelelően az apomorfin, egy erős vegyes D1/D2 receptor agonista, és a kinpirol, egy erős szelektív D2 receptor agonista, de nem az SKF 38393, egy szelektív D1 receptor agonista, ebbe a hipotalamusz magba injektálva dózisfüggő módon képes volt pénisz erekciót kiváltani, és az ezen D2 receptor agonisták által kiváltott szexuális választ a D2 receptor antagonisták, például a haloperidol és az l-szulpirid, de az SCH 23390, egy szelektív D1 receptor antagonista nem szüntette meg (Melis et al., 1987). Az apomorfin azon képességét, hogy a paraventrikuláris magba injektálva pénisz erekciót idézzen elő, telemetriás vizsgálatok is megerősítették, amelyek kimutatták, hogy a paraventrikuláris magba adott dopamin agonista képes növelni az intrakavernózus nyomást éber hím patkányokban a szisztémás vérnyomás módosítása nélkül (Chen et al., 1999; Giuliano és Allard, 2001), ahogyan azt szisztémás injekció után is megfigyelték (Bernabè et al., 1999). Ezek a vizsgálatok megerősítették a D2 receptorok fő szerepét is, mivel a D1 receptor agonistákról általában kiderült, hogy nem képesek növelni az intrakavernózus nyomást, ha a paraventrikuláris magba injektálják (Chen et al., 1999).
Számos kísérleti bizonyíték állt rendelkezésre, amelyek arra utaltak, hogy a paraventrikuláris D2 receptorok, amelyek stimulációja pénisz erekciót okoz, az oxitocinerg neuronok sejttestein helyezkednek el. Először is, a paraventrikuláris mag dopaminerg idegvégződéseket tartalmaz, amelyek az úgynevezett incertohypothalamus dopaminerg neuronjaihoz tartoznak. Ezen neuronok sejttestei Dahlstrom és Fuxe (1964) A13 és A14 csoportjában helyezkednek el, kiterjedten elágaznak és számos hipotalamuszbeli struktúrát beidegzenek, beleértve a neurohipofízisbe és/vagy a hipotalamuszon kívüli agyterületekre vetülő paraventrikuláris oxitocinerg neuronokat is (Buijs et al., 1984; Lindvall et al., 1984).
Ezeknek a dopaminerg neuronoknak a paraventricularis szinten való részvételét a pénisz erekciójának és kopulációjának szabályozására mikrodialízis vizsgálatokkal alátámasztják, amelyek azt mutatják, hogy az extracelluláris dopamin és az 3,4-dihidroxi-fenil-ecetsav (DOPAC), a fő metabolitja, koncentrációi a dializátumban megnövekednek. a szexuálisan hatásos hím patkányok paraventricularis magja, amely nem érintkező erekciót mutat, ha nem hozzáférhető ovariektomizált ösztrogén + progeszteron-alapozó, befogadó nőstény jelenlétében helyezik el őket (Melis és mtsai, 2003).
A dopamin- és DOPAC-koncentrációk növekedése még nagyobb volt, amikor a receptív nősténnyel való párzást engedélyezték (Melis et al., 2003), amint azt a mediális preoptikus területen (Hull et al., 1995) és a nucleus accumbensben (Pfaus és Everitt, 1995) is megfigyelték. Másodszor, számos tanulmány kimutatta, hogy a paraventrikuláris D2 receptorok stimulációja által kiváltott pénisz erekciót az ezeken a területeken felszabaduló oxitocin közvetíti. Ennek megfelelően az apomorfin, pénisz erekciót kiváltó dózisban adagolva, képesnek bizonyult az oxitocin koncentrációjának növelésére, nemcsak patkányok és majmok plazmájában (Melis et al., 1989a; Cameron et al., 1992), hanem az extrahypothalamikus agyterületeken, például a hippocampusban is (Melis et al., 1990). Ezekkel az eredményekkel összhangban, a paraventrikuláris magba injektált apomorfinról, olyan dózisban, amely pénisz erekciót vált ki, nemrégiben kimutatták, hogy képes növelni az extracelluláris dopaminkoncentrációt a nucleus accumbensben, ezt a hatást pedig csökkenti az oxitocin receptor antagonista d(CH2)5Tyr(Me)2-Orn8-vasotocin, amelyet a ventrális tegmentális területre injektálva csökkent (Succu et al., 2007; Melis et al., 2009a) (lásd még a 4. szakaszt). Harmadszor, a paraventrikuláris mag kétoldali elektrolitikus léziói, amelyek szinte teljesen eliminálják az oxitocint az extrahypothalamikus agyterületekről (Hawthorn et al., 1985), megszüntetik az apomorfin által kiváltott pénisz erekciót (Argiolas et al., 1987a), és a laterális kamrákba, de nem a paraventrikuláris magba adott szelektív oxitocin receptor antagonisták dózisfüggően csökkentik az apomorfin által kiváltott pénisz erekciót, hasonló hatékonysággal, mint ezek a vegyületek az oxitocin receptorok blokkolásában (Melis et al., 1989b). Az oxitocinreceptor-antagonisták rendkívül hatékonyak a férfi szexuális viselkedés elősegítésében, amelyet nemcsak az oxitocin, hanem az apomorfin is kivált (Argiolas et al., 1988, 1989).
Ami azt a mechanizmust illeti, ahogyan a dopamin vagy a dopaminreceptor agonisták által aktivált D2 receptorok fokozzák az oxitocinerg neuronok aktivitását, ezáltal oxitocint szabadítanak fel az extrahypothalamikus agyterületeken és a gerincvelőben, számos kísérleti adat alátámasztja azt a hipotézist, hogy a D2 receptorok stimulációja növeli az intracelluláris Ca2+ ionok koncentrációját az oxitocinerg neuronok sejtjeiben, ami a nitrogén-monoxid-szintáz, egy Ca2+-kalmodulin-függő enzim aktiválódásához vezet, amely jelen van ezekben a sejtekben (Vincent és Kimura, 1992; Torres et al., 1993; Sanchez et al., 1994; Sato-Suzuki et al., 1998). A megnövekedett nitrogén-monoxid-termelés viszont az oxitocinerg neuronok aktiválódását okozza. Ennek megfelelően (1) az apomorfin által kiváltott pénisz erekciót megakadályozták szerves kalciumcsatorna-blokkolók és a GVIA-konotoxin, az N-típusú feszültségfüggő Ca2+-csatornák erős és szelektív blokkolója (McCleskey et al., 1987), amelyeket a paraventrikuláris magba adtak be (lásd Argiolas et al., 1990, és az ott található hivatkozások); (2) az apomorfin által kiváltott pénisz erekciót megakadályozták a paraventrikuláris magba adott nitrogén-monoxid-szintáz inhibitorok (Melis et al., 1994c); és (3) az apomorfin és más D2-receptor agonisták olyan dózisban adva, amely pénisz erekciót vált ki, növelték a nitrogén-monoxid termelést az intracerebrális mikrodialízissel kapott paraventrikuláris dializátumban, ezt a növekedést pedig csökkentették a paraventrikuláris nitrogén-monoxid-szintáz inhibitorok olyan dózisban adva, amelyek csökkentik a D2-receptor agonista által kiváltott pénisz erekciót (Melis et al., 1996). A nitrogén-monoxid paraventrikuláris oxitocinerg neuronokat aktiváló mechanizmusa még mindig ismeretlen, bár a rendelkezésre álló adatok arra utalnak, hogy a nitrogén-monoxid intracelluláris hírvivőként működik, és a guanilát-cikláz nem vesz részt ebben. Valójában a ciklikus GMP aktív foszfodiészteráz-rezisztens analógja, a 8-bróm-ciklikus GMP, nem képes pénisz erekciót kiváltani, amikor a paraventrikuláris magba adták be (2. ábra) (lásd Melis és Argiolas, 1995b és az abban található hivatkozások).
A fenti értelmezést gyakran nem tartották meggyőzőnek, főként azért, mert a dopamin D2 receptorok stimulációja általában a receptorokat tartalmazó neuronok sejtjeinek gátlásához, nem pedig gerjesztéséhez kapcsolódik különböző G-fehérjéhez kapcsolt mechanizmusokon keresztül (lásd Sokoloff és Schwartz, 1995). Azonban ennek az eltérésnek egy lehetséges magyarázatát, amely összhangban van a paraventrikuláris oxitocinerg neuronok dopamin általi közvetlen stimulációjával, a közelmúltban javasolták egy G-fehérjéhez kapcsolt dopamin D4 receptor felfedezésével , amely a D2 receptor család (D2, D3 és D4) tagja, és amelynek stimulációja növeli a Ca2+ beáramlást a receptor altípus klónozott változatát tartalmazó sejtkészítményekben (Moreland et al., 2004). Ennél is fontosabb, hogy egy szelektív D4 receptor agonistát (pl. ABT 724) (N-metil-4-(2-cianofenil)piperazinil-3-metilbenzamid-maleát) szisztémás adagolás esetén képesnek találták a pénisz erekciójának kiváltására hím patkányokban (Brioni et al., 2004). Ezt a hatást nem tapasztalták a szelektív D2 receptor altípus agonista PNU-95666E (R-5,6-dihidro-N,N-dimetil-4Himidazo[4,5,1-i]kinolin-5-amin) esetében (Hsieh et al., 2004), amely szintén nem tudta növelni a Ca2+ beáramlást a D4 receptor altípus klónozott változatát tartalmazó sejtkészítményekben (Brioni et al., 2004; Moreland et al., 2004). A fenti hipotézissel és eredményekkel összhangban a PD 168,077 (N-metil-4-(2-cianofenil)piperazinil-3metilbenzamid-maleát), a PIP-3EA (2-[4-(2-metoxifenil)piperazin-1-ilmetil]imidazo[1,2-a]piridin) és más szelektív D4 receptor agonisták (Heier et al., 1997; Melis et al., 2006b; Löber et al., 2009) képesek voltak pénisz erekciót kiváltani szisztémás, icv és a paraventrikuláris magba injektálva, bár kevésbé hatékonyan, mint az apomorfin. Ezen D4 receptor agonisták pro-erekciós hatását az L-745,870 (3-(4-[klórfenil]piperazin-1-il)-metil-1H-pirrolo[2,3-B]piridin-trihidroklorid), egy szelektív D4 receptor antagonista gátolta (Patel et al., 1997; Melis et al., 2005, 2006b; Löber et al., 2009).
Végül a fenti D4 receptor agonisták pro-erektív hatását is csökkentették a paraventricularis magba adott nitrogén-monoxid-szintáz inhibitorok és a d (CH2) 5Tyr (Me) 2-Orn8-vazotocin, egy szelektív oxitocin receptor antagonista. az icv-t, de nem a paraventricularis magban. Ezek az eredmények összhangban vannak azzal a hipotézissel, hogy a D4 receptor agonisták az oxitocinerg neuronokat is stimulálják a nitrogén-oxid szintetáz aktiválásával és az oxitocin felszabadításával az extrrahypothalamicus agyterületeken, ami elősegíti a pénisz erekcióját, amint azt az apomorfin és a klasszikus D2 agonisták mutatják (Melis et al. 2005, 2006b; Löber és munkatársai, 2009).
A fenti eredmények alátámasztják azt a hipotézist is, hogy a dopamin a paraventrikuláris oxitocinerg neuronok sejttestein található D4 receptorokra hatva indukálja a pénisz erekcióját, és ezáltal fokozott Ca2+ beáramlást okoz az oxitocinerg neuronok sejttesteibe, ami fokozott nitrogén-monoxid termeléshez vezet. A nitrogén-monoxid viszont aktiválja az oxitocinerg neuronokat, hogy oxitocint szabadítsanak fel az extrahypotalamusz agyterületein és a gerincvelőben, amint azt már tárgyaltuk. E tekintetben figyelemre méltó, hogy a dopaminreceptorokat a paraventrikuláris magban található oxitocinerg neuronok sejttesteiben csak a közelmúltban azonosították kettős immunfluoreszcens vizsgálatokkal, nagy szelektivitású D2, D3 és D4 receptor antitestekkel, valamint oxitocin antitestekkel. Ezek a vizsgálatok mindhárom D2 receptor altípus (D2, D3 és D4) expresszióját mutatták ki, amelyek külön-külön kolokalizálódtak az oxitocinerg neuronok sejttesteiben a paraventrikuláris magban (valamint a supraoptikus magban és a mediális preoptikus területen is) (Baskerville és Douglas, 2008; Baskerville et al., 2009).
Ez erős neuroanatómiai alátámasztást nyújt annak a lehetőségnek, hogy a D2 típusú dopamin és dopaminreceptor-agonisták a fent említett extrahypothalamikus agyterületekre, például a gerincvelőbe, a ventrális tegmentális területre, a hippocampusba és az amygdalába projicáló oxitocinerg neuronok közvetlen aktiválásával indukálják a pénisz erekcióját. Ezek az eredmények azonban nem segítenek a D2 receptor altípus(ok) azonosításában, amelyek stimulációja okozza az erekciós választ. Sajnos még azok a vizsgálatok sem nyújtanak segítséget, amelyek a paraventrikuláris magban található dopaminreceptor-agonisták által aktivált oxitocinerg neuronok azonosítását célozzák. Valójában, a különböző dopaminreceptor-altípusokra gyakorolt eltérő aktivitás ellenére, akár a kevert dopaminreceptor-agonisták (pl. apomorfin), akár a szelektív D2 receptor-agonisták (pl. kinpirol, amely minden D2 receptor altípusra hat), akár a szelektív D4 receptor agonisták az oxitocinerg neuronok aktiválódását okozzák, amit a paraventrikuláris mag parvocelluláris oxitocinerg neuronjaiban az FOS fehérje növekedése mér (Bitner et al., 2006). Ezt a megállapítást azonban a közelmúltban megkérdőjelezték, mivel a paraventrikuláris oxitocinerg neuronokban az FOS fehérje szintjének növekedését csak akkor észlelték, amikor a pénisz erekcióját quinerolánnal indukálták, amely főként a D2 és D3 receptor altípusokra hat, de nem a PD 168077-tel, egy D4 receptor agonistával, annak ellenére, hogy mindkét vegyület képes szexuális választ kiváltani (Baskerville et al., 2009).
A további D2 receptor altípusok (főleg D2 és D3) szelektív agonistáival való további kísérletek szükségesek az egyes dopamin receptor altípusok pontos szerepének azonosításához az erekciós funkció szabályozásában paraventrikuláris szinten. Ebben a tekintetben, amint már korábban említettük, az apomorfin, amely hatásosan hat az összes dopamin receptor altípusra (lásd Brioni és munkatársai, 2004 és az ott található hivatkozások), sokkal hatékonyabb, mint a D4 receptor agonisták a pénisz erekciójának indukálásában, amikor a paraventricularisba injektáljuk. atommag. Ez magyarázható az apomorfin D4 receptorokra gyakorolt nagyobb affinitással, mint a vizsgált D4 receptor agonistáké, vagy alternatív módon a D4 receptor agonisták D4 receptor részleges agonistaként működhetnek, vagy a különböző dopamin receptor altípusok egyidejű aktiválása apomorfinnal az oxitocinerg neuronok nagyobb mértékű aktiválódását eredményezik, mint a pénisz erekcióját közvetítő neuronok, mint a D2 receptor agonisták aktiválása csak a D4 receptor altípusban.
A dopamin D1 és D2 receptorok közötti kölcsönhatásokat már leírták a szexuális viselkedés szabályozásában a mediális preoptikus terület szintjén (lásd Hull et al., 1989). Abban az esetben, ha a szelektív D2 receptor agonisták pénisz erekció kiváltására való képtelensége megerősítést nyer (Hsieh et al., 2004) (de lásd Depoortère et al., 2009), például még a paraventrikuláris magba történő injekciózás után is, részletesen elemezni kell a D3 receptorok önmagukban vagy a D4 receptorokkal együttesen betöltött fő szerepét a pénisz erekcióját közvetítő oxitocinerg neuronok aktiválásában (lásd Baskerville et al., 2009). Sajnos jelenleg nem állnak rendelkezésre szelektív D2 és D3 receptor agonisták (pl. amelyek in vitro legalább négy/öt nagyságrenddel különböznek affinitásukban e két receptor altípus iránt). Emiatt a legújabb feltételezés, miszerint a D3 receptorok közvetítik a klasszikus D2 receptor agonisták által kiváltott pénisz erekciót, – amely főként az in vitro kísérletekben jellemzett feltételezett D3 receptor antagonisták azon képességén alapul, hogy csökkentik a klasszikus D2 agonisták, például az apomorfin, a kinpirol és a pramipexol által kiváltott pénisz erekciót, amelyek hatékonyan aktiválják az összes dopamin D2 receptor altípust (Collins et al., 2009) – mindenképpen más kísérletekkel kell validálni. Ez az validálás azért is szükséges, mert ebben a vizsgálatban nem találtak D4 receptor agonistáknak a pénisz erekciójára gyakorolt hatását, ellentétben a fent idézett vizsgálatok eredményeivel, amelyek a D4 receptor agonisták proerektilis hatását mutatják ki. Valójában még az apomorfin azon képessége is, hogy a D4 receptor knockout egerekben ugyanolyan hatékonysággal képes pénisz erekciót (és ásítást) kiváltani, mint a vad típusú D4 receptor knockout egerekben, valamint a D3 receptor antagonisták azon képessége, hogy megszüntetik az apomorfin választ ezekben az állatokban (Collins et al., 2009), nem tekinthető végleges bizonyítéknak a D3 receptor altípus szelektív szerepére a D2 receptor agonista által kiváltott pénisz erekcióban. A fajok közötti különbségektől eltekintve a neurotranszmitter/neuropeptid és/vagy neurotranszmitter/neuropeptid receptor génablációval (neurotranszmitter/neuropeptid és/vagy neurotranszmitter/neuropeptid receptor knockout állatokkal) végzett vizsgálatok általában további zavart és bonyodalmakat okoztak a neurotranszmitterek és/vagy neuropeptidek és receptoraik feltételezett szexuális szerepének megerősítésében. Nevezetesen, az oxitocin génablációja olyan oxitocin knockout egereket hoz létre, amelyek normálisan párosodnak és párosodnak, mintha az oxitocin nem lenne szükség a párzáshoz és a párzáshoz. A homozigóta nőstény oxitocin-kiütött egerek is normális párzást és szülést mutatnak, bár a tejleadás jelentősen károsodott (Nishimori et al., 1996; Young et al., 1996). A neuronális nitrogén-monoxid-szintázt kódoló gén ablációja szintén olyan nitrogén-monoxid-szintáz-kiütött egereket eredményez, amelyek normálisan párosodnak és kopulálnak (Huang et al., 1993). Ez annak ellenére történik, hogy a nitrogén-monoxid-szintáz nitrogén-monoxidot termel, amely a pénisz erekciójának egyik fő fiziológiai mediátora a pénisz szintjén (Burnett et al., 1992; Rajfer et al., 1992) és központi szinten, a hipotalamusz paraventrikuláris magjában (Argiolas, 1994; Benelli et al., 1995; Melis et al., 1998). Ezek az eredmények azonban valószínűleg a reproduktív fiziológia egy fontos jellemzőjére utalnak, azaz a központi és perifériás szinten a szabályozásában részt vevő rendszerek redundanciájára.
Az ilyen redundancia minden bizonnyal evolúciós eredetű, mivel garantálja a gének átadását a következő generációnak a faj túlélése érdekében. Ezért az a tény, hogy a D4 receptor gén ablációja nem változtatja meg az apomorfin pro-erekciós hatását, arra utal, hogy a D4 receptorok, mint például az oxitocin és a nitrogén-monoxid, csak néhányat jelentenek az erekciós funkciót szabályozó rendszerekben működő mediátorok közül, ahelyett, hogy azt sugallnák, hogy ezeknek a receptoroknak nincs szerepük a pénisz erekciójának és a szexuális viselkedésnek a szabályozásában. Egy másik tanulmány nemrégiben számolt be arról, hogy a D4 agonisták nem képesek pénisz erekciót kiváltani, amikor szisztémásan adták őket különböző törzsekhez tartozó hím patkányoknak (Depoortère et al., 2009). Collins és munkatársai munkájával ellentétben azonban... (2009), és hogy a különböző D2 receptor altípusok szerepéről a pénisz erekciójának szabályozásában alkotott kép még rejtélyesebb legyen, ez a tanulmány azt is kimutatta, hogy a feltételezett szelektív D3 receptor antagonisták szisztémásan adagolva nem tudták csökkenteni az apomorfin által kiváltott pénisz erekciót az apomorfin pro-erekciós hatására érzékenyebb törzsbe tartozó hím patkányokban, míg a szexuális választ (és az ásítást) a szelektív D2 antagonista L-741,626 (3-[[4-(4-klórfenil)-4-hidroxipiperidin-1-il]metil-1H-indol) antagonizálta, ami arra engedett következtetni, hogy a D3 és D4 receptorok helyett a D2 receptorok játsszák a fő szerepet a D2 agonista által kiváltott pénisz erekcióban (Depoortère et al., 2009). Végül, nem zárható ki teljesen annak a lehetősége, hogy a dopaminreceptor agonistáknak a pénisz erekcióját közvetítő oxitocinerg neuronokra gyakorolt serkentő hatása legalább részben inkább közvetett, mint közvetlen, pl. más, a paraventrikuláris magban az oxitocinerg neuronok aktivitását modulálni képes neurotranszmitterek aktivitásának változásai közvetítik vagy befolyásolják.
3.2. Glutaminsav-oxitocin kölcsönhatás a paraventricularis magban
A hipotalamusz paraventrikuláris magja igen gazdag olyan szinapszisokban, amelyek neurotranszmitterként egy serkentő aminosavat (pl. glutaminsavat és aszparaginsavat ) tartalmaznak (Van Den Pol, 1991). Az ebben a magban található serkentő aminosavak számos funkcióban vesznek részt, beleértve a pénisz erekcióját és a szexuális viselkedést (Roeling et al., 1991; Melis et al., 1994b, 2000, 2004b). Ennek megfelelően az N-metil-d-aszparaginsav (NMDA), az NMDA receptor altípus szelektív agonistája – de nem a (±)-_-amino-3-hidroxi-5-metil-izoxazol-4-propionsav (AMPA), az AMPA receptor altípus szelektív agonistája, vagy a (±)-transz(1)-amino-1,3-ciklopentán-dikarbonsav (ACPD), a metabotrop receptor altípus szelektív agonistája – képesnek bizonyult pénisz erekció kiváltására, amikor szabadon mozgó patkányok paraventrikuláris magjába injektálták (Melis et al., 1994b). Az NMDA erekciót elősegítő hatását a (+)MK-801, egy nem kompetitív NMDA receptor antagonista (Woodruff et al., 1987) gátolta, amelyet a paraventrikuláris magba injektáltak (Melis et al., 1994b). Ezekkel az eredményekkel összhangban, az intrakavernózus nyomás monitorozását célzó telemetriás vizsgálatokban az NMDA sokkal aktívabbnak bizonyult, mint a többi serkentő aminosav receptor altípus agonistái, amikor a paraventrikuláris magba injektálták az intrakavernózus nyomás növelésében ébren lévő vagy altatott hím patkányokban (Zahran et al., 2000; Chen és Chang, 2003).
Amint azt fentebb az oxitocin és a dopamin esetében javasoltuk, valószínű, hogy a pénisz erekcióját közvetítő NMDA receptorok az oxitocinerg neuronok sejttesteiben találhatók, mivel a serkentő aminosav idegvégződések a paraventrikuláris magban ütköznek az oxitocinerg sejttestekkel (Van Den Pol, 1991). A dopaminreceptor agonistákkal kapcsolatos tapasztalatokhoz hasonlóan az NMDA pro-erekciós hatását nyilvánvalóan az oxitocinerg neurotranszmisszió aktiválása közvetíti, amelyet az oxitocin antagonista d(CH2)5Tyr(Me)2-Orn8-vasotocin icv-vel, de nem a paraventrikuláris magban adva szüntet meg (lásd Argiolas és Melis, 1995, 2004, 2005 és az ott található hivatkozások). Hasonlóképpen, az NMDA által kiváltott oxitocinerg neurotranszmisszió aktivációja szintén másodlagos a nitrogén-monoxid-szintáz aktivációjához képest, mivel az NMDA által kiváltott pénisz erekciót megakadályozzák a paraventrikuláris magba adott nitrogén-monoxid-szintáz inhibitorok (N-nitro-N-metil-arginin-metil-észter és N-metil-tio-l-citrullin), és az NMDA a paraventrikuláris magba olyan dózisban injektálva, amely pénisz erekciót vált ki, fokozza a nitrogén-monoxid termelést a hipotalamusz magjában (lásd Argiolas és Melis, 1995, 2004, 2005 és az ott található hivatkozások). Ami a dopaminreceptor-agonistákat illeti, a nitrogén-monoxid-szintáz NMDA által kiváltott aktivációja szintén másodlagos lehet az oxitocinerg sejtekbe a Ca2+-csatornához kapcsolt NMDA-receptorokon keresztül történő megnövekedett Ca2+ beáramláshoz képest, amint azt számos idegi preparátum kimutatta (áttekintésért lásd Snyder, 1992; Southam és Garthwaite, 1993; Schuman és Madison, 1994 és az ott található hivatkozások). A nitrogén-monoxid viszont aktiválja az oxitocinerg neurotranszmissziót (lásd fent). A pénisz erekcióját közvetítő paraventrikuláris oxitocinerg neuronokat aktiváló glutamáterg projekciók eredete ismeretlen, bár néhány neuroanatómiai és elektrofiziológiai bizonyíték arra utal, hogy ezek legalább részben a hippocampusból származhatnak (Saphier és Feldman, 1987; Chen et al., 1992). Bár további munkára van szükség a paraventrikuláris magba irányuló glutamáterg projekciók eredetének jobb jellemzéséhez, a paraventrikuláris magban lévő glutaminsav szerepét a pénisz erekciójának és a szexuális viselkedés szabályozásában egyértelműen alátámasztják a mikrodialízis vizsgálatok. Ennek megfelelően a glutaminsav és az aszparaginsav extracelluláris koncentrációja megnőtt a hím patkányok paraventrikuláris magjából nyert dializátumban, amelyek kontaktusmentes erekciót mutattak, amikor hozzáférhetetlen ösztrogén + progeszteron által előidézett receptív nőstény patkányok jelenlétébe helyezték (Melis et al., 2004b), amely pénisz erekciót szintén a központi oxitocinerg transzmisszió aktiválása közvetíti (Melis et al., 1999a,b). Az ilyen növekedéseket még nagyobbnak találták, amikor a receptív nővel való közösülést engedélyezték (Melis et al., 2004a). Összhangban azzal a hipotézissel, hogy a pénisz erekciója és a közösülés során a paraventrikuláris magban fokozott serkentő aminosavak aktivitása következik be, mind a kontaktusmentes erekciók, mind a kopulációs viselkedés (amelynek során a kopulában pénisz erekció következik be) csökken a paraventrikuláris magban található NMDA receptorok blokkolása által, és ezt a csökkenést a nitrogén-monoxid-termelés növekedésének csökkenése követi, amely ebben a hipotalamusz magban fordul elő ezekben a fiziológiai kontextusokban (Melis et al., 2000). A GABAerg idegvégződésekből felszabaduló csökkent GABA-felszabadulás következtében a paraventrikuláris magban is megfigyelték a CB1 antagonista SR 141761A általi kannabinoid CB1 receptorok blokádját, melyet az oldalsó kamrákba vagy közvetlenül a paraventrikuláris magba adtak be olyan dózisokban, amelyek pénisz erekciót váltanak ki (lásd Succu et al., 2006; Castelli et al., 2007). Ez a növekedés a nitrogén-monoxid-szintáz aktiválódásához vezetett az oxitocinerg neuronok sejttesteiben, növelve a nitrogén-monoxid termelést. A nitrogén-monoxid viszont aktiválja az oxitocinerg neuronokat, amelyek a fent leírtak szerint közvetítik a pénisz erekcióját. Ezzel a mechanizmussal összhangban az SR 141761A által kiváltott pénisz erekciót csökkentette az NMDA receptorok blokádja és a nitrogén-monoxid-szintáz inhibitorok, de nem csökkentette a paraventrikuláris magban található dopamin vagy oxitocin receptorok blokádja, míg az icv-ként adott oxitocin receptor antagonisták a központi oxitocin receptorok blokádjával megakadályozták (Melis et al., 2004a, 2006a).
3.3. Oxitocin-dopamin kölcsönhatás a ventrális tegmentalis területen
Az oxitocin pénisz erekciót indukál, amikor a ventrális tegmentális terület caudalis részébe injektálva dózisfüggő módon történik.(Melis és mtsai., 2007). A legalacsonyabb, egyoldalúan beadott aktív dózis 20 ng volt, míg a legnagyobb vizsgált dózis 100 ng. Az oxitocin hatását az oxitocinerg receptorok aktiválása közvetíti, mivel a szexuális válasz megszűnik az oxitocin antagonista d (CH2) 5Tyr (Me) 2-Orn8-vazotocin előzetes injekciójával a caudal ventralis tegmentalis területen. Ezek a receptorok lokalizálódnak a dopaminerg neuronok sejt-testeiben, amelyek főleg a magok akumbensének héjához jutnak. Ennek megfelelően az (1) kettős immunfluoreszcencia vizsgálatok azt mutatják, hogy a caudalis ventrális tegmentális területen az oxitocinerg rostok szorosan érintkeznek a dopaminerg neuronok sejtjeivel, amelyek többsége pozitívan jelölve van a tirozin-hidroxilázra, és a korábban Fluorogold retrográd nyomjelzőt tartalmazza. a mag-accumbens (Melis és mtsai., 2007) és a (2) ventrális tegmentális területének oxitocin által kiváltott pénisz erekciója egyidejűleg az extracelluláris dopamin koncentrációjának növekedésével párhuzamosan keletkezik. a nukleusz accumbens (Melis et al., 2007). Az oxitocin által kiváltott pénisz erekció egyidejűleg a nitrogén-monoxid termelésének növekedésével is jelentkezik a ventrális tegmentális területen, mivel mindkét válasz nemcsak a d (CH2) 5Tyr (Me) 2-Orn8-vazotocin és a nitrogén-monoxid szintáz inhibitor S- metil-tio-1-citrulin, hanem a _-conotoxin, egy feszültségfüggő Ca2 + csatorna blokkoló és ODQ (1H- [1,2,4] oxadiazol [4,3-a] kinoxalin-1-one), a guanilát erős inhibitora. cikláz, az oxitocin előtt a caudalis ventrális tegmentalis területen (Succu és munkatársai, 2008). Mivel az oxitocinerg szálakkal érintkezett Fluorogold jelzett dopaminerg sejttestek közül sok a tirozin-hidroxilázra pozitívnak bizonyult a caudalis ventralis tegmentalis területen, szintén pozitívan jelöltük a nitrogén-monoxid-szintáz és a guanilát-cikláz (Succu et al., 2008), oxitocin a kiváltott pénisz erekciót a következő mechanizmus közvetíti. Az oxitocinerg receptorok aktiválása a dopaminerg sejtekben a peptid növeli a Ca2 + beáramlását a dopaminerg neuronok sejtjeiben. Ez aktiválja a nitrogén-oxid szintetázt, egy Ca2 + -kalmodulin-függő enzimet, ezáltal növelve a nitrogén-oxid termelését. A nitrogén-oxid viszont aktiválja a guanilát-ciklázt, ami a ciklikus GMP koncentrációjának növekedéséhez vezet. A ciklikus GMP aktiválja a dopaminerg idegsejteket, amelyek a magba ágyazódnak. A caudalis ventrális tegmentális területbe befecskendezett oxitocin által kiváltott cirkuláris GMP szerepét a cytális ventrális tegmentális területbe befecskendezett 8-bróm-ciklikus GMP, a ciklikus GMP aktív foszfodiészter-rezisztens analógja is támogatja, hogy a pénisz erekcióját indukálja, amikor az injekciót bejuttatjuk. a caudalis ventrális tegmentális terület, és növeli a sejten kívüli dopamin mennyiségét a nukleáris accumbens dialízisében (Succu és munkatársai, 2008; Melis és munkatársai, 2009a). Ez ellentétben áll azzal a mechanizmussal, amellyel a nitrogén-monoxid aktiválja az oxitocinerg neuronokat a paraventricularis magban, mivel 8-bróm-ciklusos GMP nem képes kiváltani a pénisz erekcióját, amikor ezt a magot injektáljuk (Melis és Argiolas, 1995b). 2). A nucleus accumbensben felszabaduló dopamin szerepét a caudalis ventrális tegmentális területbe injektált oxitocin által kiváltott pénisz erekcióban alátámasztja a haloperidol, egy erős dopaminreceptor-antagonista, amelyet a nucleus accumbensbe injektálnak, hogy csökkentse az oxitocin választ (Melis et al., 2007).Ami a dopamin által aktivált neurális útvonalakat a magban az obumbensben, ami pénisz erekcióhoz vezet, még nem ismertek. A rendelkezésre álló adatok azonban arra utalnak, hogy ezek az utak aktiválják a dopamin neurotranszmissziót a hypothalamus paraventricularis magjában. Ennek megfelelően az oxitocin által kiváltott pénisz erekció egyidejűleg az extracelluláris dopamin növekedésével párosul, nemcsak a \ t a paraventricularis magban, és a paraventricularis magba injektált dopamin receptor antagonista haloperidol antagonizálja (Melis és mtsai., 2007). AEzek az eredmények együttesen alátámasztják azt az elképzelést, hogy a paraventricularis magból származó oxitocinerg neuronok és a caudalis ventrális tegmentális területre vetítve, amikor aktiválódnak a felszabaduló oxitocin ezen a területen, ezáltal aktiválva egy NO-ciklusos GMP jelzőrendszert, amely aktiválja a mesolimbikus dopaminerg neuronokat [Melis és munkatársai: 2007, 2009a; Succu és munkatársai, 2008]. A nukleinsavban felszabaduló dopamin viszont aktiválja az idegsejteket, amelyek az inert-hipotalamuszos dopaminerg neuronok aktiválódásához vezetnek, amelyek stimulálják a gerincvelő mediáló pénisz erekcióját kiváltó paraventricularis oxitocinerg neuronokat. Ugyanakkor a paraventricularis magban felszabaduló dopamin aktiválhatja az oxitocinerg neuronokat is, amelyek hipotalamuszos agyterületekre terjednek ki, mint például a ventrális tegmentális terület, a hippocampus, az amygdala és talán más agyterületek.
Amint azt fentebb felidéztük, ezzel a hipotézissel összhangban az apomorfin, amelyet a paraventrikuláris magba injektáltak a pénisz erekcióját kiváltó dózisban, szintén növeli az extracelluláris dopaminkoncentrációt a nucleus accumbensben, ezt a hatást pedig csökkenti az oxitocin receptor antagonista d(CH2)5Tyr(Me)2-Orn8-vasotocin, amelyet a ventrális tegmentális területre injektálnak (Succu et al., 2007; Melis et al., 2009a). A fenti idegpályák együttesen egy hipotetikus idegi áramkört alkothatnak, amely a dopamint, az oxitocint és más neurotranszmittereket (pl. glutaminsavat, lásd alább) foglalja magában, és nemcsak a szexuális teljesítményt, hanem a szexuális motivációt és a szexuális jutalmazást is befolyásolja (lásd 4. szakasz).
3.4. Oxitocin-glutaminsav kölcsönhatás a hippocampus ventrális szubiculumában
Az oxitocin pénisz erekciót indukál, amikor a ventrálisba, de nem a dorsalis aliculumba injektálva, dózisfüggő módon (Melis et al., 2009b). A szexuális reagálást az oxitocin receptorok stimulálása közvetíti, melyet az oxitocin ugyanazon helyére adott d (CH2) 5Tyr (Me) 2-Orn8-vazotocin előzetes injekciója megszüntet, amint azt más agyi területeken is megtaláljuk (lásd fent) . Ezeknek a receptoroknak a lokalizációját illetően a rendelkezésre álló adatok arra utalnak, hogy a nitrogén-monoxid-szintázban gazdag neuronok sejtjeiben lokalizálódnak.
Ennek megfelelően a mikrodialízis vizsgálatok azt mutatják, hogy az oxitocin által kiváltott pénisz erekció egyidejűleg jelentkezik a nitrogén-monoxid termelésének növekedésével a ventrális szubikulumban, és ezt a növekedést nemcsak a nitrogén-monoxid-szintáz inhibitor S-metil-tio-l-citrullin előzetes injekciója és a nitrogén-monoxid-megkötő hemoglobin szünteti meg, hanem a d(CH2)5Tyr(Me)2-Orn8-vazotocin is, amelyeket mindegyiket ugyanabba az oxitocin helyre adnak be, olyan dózisokban, amelyek antagonizálják a pénisz erekcióját (Melis et al., 2010). Ami még fontosabb, az oxitocin által kiváltott pénisz erekció egyidejűleg jelentkezik az extracelluláris glutaminsav koncentrációjának növekedésével a ventrális szubikulumban, amelyet csak részben antagonizál a ventrális szubikulumba adott nem kompetitív NMDA receptor antagonista (+MK-801) (Melis et al., 2010). Ezek az eredmények együttesen arra utalnak, hogy az újonnan képződött nitrogén-monoxid intercelluláris hírvivőként aktiválja a glutaminsav neurotranszmisszióját, ami pénisz erekcióhoz vezet, valószínűleg a ventrális szubikulumból az extra-hippocampális agyterületekre irányuló neurális efferens nyúlványokon keresztül. Ezzel a hipotézissel összhangban a ventrális szubikulumba injektált NMDA dózisfüggő módon indukálja a pénisz erekcióját, és ezt a hatást teljesen antagonizálja az előzőleg ugyanazon helyre injektált (+)MK-801, de az S-metil-tio-l-citrullin, a hemoglobin vagy a d(CH2)5Tyr(Me)2-Orn8-vazotocin nem (Melis et al., 2010). Ami a ventrális szubikulumban serkentő aminosavak (azaz glutaminsav) által aktivált, az extra-hippocampális agyterületekre nyúló neurális efferens útvonalakat illeti, valószínű, hogy ezek glutamátergek, akárcsak a hippocampális efferens nyúlványok többsége. Jelenleg csak arra lehet következtetni, hogy ezek a projekciók modulálják a mezolimbikus dopaminerg neuronok aktivitását, amelyek viszont modulálják az incerto-hypothalamusz dopaminerg neuronok aktivitását a paraventrikuláris magban, ami az oxitocinerg neuronok aktiválódásához vezet, amelyek közvetítik a pénisz erekcióját, amint azt már tárgyaltuk (lásd fent).
Ennek megfelelően a ventrális szubikulum oxitocin által kiváltott pénisz erekció egyidejűleg következik be az extracelluláris dopamin koncentrációjának növekedésével a nucleus accumbens héjában, és ezt a növekedést, akárcsak a pénisz erekcióját, a ventrális szubikulumba az oxitocin előtt adott d(CH2)5Tyr(Me)2-Orn8-vasotocin megszünteti (Melis et al., 2009b). Továbbá, mivel a ventrális szubikulum oxitocin által kiváltott pénisz erekcióját a ventrális tegmentális területre, de nem a nucleus accumbensbe injektált (+)MK-801 is csökkenti (Melis et al., 2009b), és ez egyidejűleg jelentkezik a ventrális tegmentális területen, de nem a nucleus accumbensben lévő extracelluláris glutaminsav növekedésével, mivel mindkét választ a ventrális szubikulumba az oxitocin előtt injektált d(CH2)5Tyr(Me)-Orn8-vasotocin szünteti meg (lásd 3. ábra), valószínű, hogy a mezolimbikus dopaminerg neuronok aktivációja a ventrális tegmentális területen fokozott glutamáterg neurotranszmisszió másodlagos következménye. Ez arra utal, hogy a pénisz erekcióját szabályozó glutaminsav-dopamin kölcsönhatás létezik a ventrális tegmentális területen. További vizsgálatokra van szükség annak megállapítására, hogy a szubikulumból a ventrális tegmentális területre vezető proerektilis efferens glutamáterg útvonalak közvetlenek vagy közvetettek-e, azaz a prefrontális kéregen vagy más agyterületeken keresztül haladnak-e (lásd Melis et al., 2009b és az ott található hivatkozások). Mivel a paraventrikuláris mag is kap glutamáterg projekciókat a hippocampusból (lásd fent, valamint Saphier és Feldman, 1987), és a glutaminsav aktiválja a paraventrikuláris oxitocinerg neuronokat, beleértve azokat is, amelyek a ventrális tegmentális területre projicálnak (lásd Argiolas és Melis, 2005 és az ott található hivatkozások), és a ventrális tegmentális területen lévő oxitocin pénisz erekciót indukál és növeli a mezolimbikus dopaminerg neuronok aktivitását (lásd fent), csábító feltételezni, hogy a paraventrikuláris oxitocinerg neuronok is részt vehetnek, legalábbis részben, a mezolimbikus dopaminerg neuronok aktiválásában a ventrális szubikulumba injektált oxitocin által (lásd 4. szakasz).
4. Záró megjegyzések
A fent áttekintett tanulmányok megerősítik és kiterjesztik azokat a korai eredményeket, amelyek azt mutatják, hogy hím patkányokban az oxitocin kulcsszerepet játszik a pénisz erekciójának központi szabályozásában a hipotalamusz paraventrikuláris magjának és a gerincvelőnek a szintjén. A legújabb tanulmányok különösen azt mutatják, hogy az oxitocin más agyterületeken, azaz a ventrális tegmentális területen, a ventrális subiculumban és az amygdala posteromediális kérgi magjában hatva is befolyásolja a pénisz erekcióját.
A paraventrikuláris szinten a legfontosabb új felfedezés talán a D2 családba tartozó összes dopaminreceptor (D2, D3 és D4) expressziójának felfedezése az oxitocinerg neuronok sejttesteiben a paraventrikuláris magban (valamint a supraopticus magban és a mediális preoptikus területen) (Baskerville és Douglas, 2008; Baskerville et al., 2009). Ez erős neuroanatómiai alátámasztást nyújt annak a hipotézisnek, miszerint a dopamin és a dopaminreceptor-agonisták közvetlenül aktiválhatják az erekciós funkcióban részt vevő, és nemcsak a gerincvelőbe, hanem az extrahypothalamikus agyterületekre is vetülő oxitocinerg neuronokat . E tekintetben fontos az a felfedezés is, hogy a dopaminreceptor-agonista által kiváltott intrakavernózus nyomásnövekedést csökkenti az oxitocinerg receptorok blokkolása a lumbo-sacralis gerincvelőben (Baskerville et al., 2009). Valóban, bár ilyen bizonyítékokat altatott hím patkányokban szereztek, a megállapítás megerősíti egy paraventrikuláris-spinális oxitocinerg leszálló útvonal aktiválódását, amely részt vesz a dopaminreceptor agonista által kiváltott pénisz erekcióban. Azonban még tisztázásra vár, hogy az oxitocinerg sejttestekben jelen lévő dopaminreceptorok stimulációja által kiváltott pénisz erekció másodlagos-e a D2 család egy specifikus dopaminreceptor altípusának (D2, D3 vagy D4) aktiválódásához, vagy ezek a receptor altípusok együttműködnek az erekciós válasz modulálásában, esetleg különböző módon attól függően, hogy milyen kontextusban történik a pénisz erekciója (lásd Moreland et al., 2004; Enguehard-Gueiffier et al., 2006; Melis et al., 2006a,b; Löber et al., 2009; Collins et al., 2009; Depoortère et al., 2009; Baskerville et al., 2009).
Egy másik fontos új megállapítás az, hogy az oxitocin nemcsak a paraventricularis magba vagy a hippocampus CA1 mezőjébe, hanem a ventrális tegmentális területbe, a ventralis aliculumba és az amygdala posteromedialis kortikális magába injektálja a pénisz erekciót. Ezeket az agyterületeket nem vizsgálták a korábbi vizsgálatokban, amelyek azt mutatták, hogy az oxitocin megnövekedett spontán pénisz erekciós epizódokat eredményezett hím patkányokban, bár hasonlóan a paraventricularis magból származó lumbo-sakrális gerincvelő-oxitocinerg vetületekhez jutottak. Az oxitocint úgy találták, hogy képes volt a spontán pénisz erekciós epizódokra, amelyek felnőtt hím patkányokban fordulnak elő olyan szexuális ingerek hiányában, mint amilyenek a hozzáférhető vagy hozzáférhetetlen fogékony (ösztrogén-progeszteron alapozott) ovariektomizált női patkányok vagy a nemi szervek manipulációja, amikor a hippocampus paraventricularis magjába és CA1 mezőjébe kerül, de nem a dorsalis aliculumban, az oldalsó septumban, a caudate magban, a medialis preopticus területen, a ventromedialis magban és a supraopticus magban (Melis et al. , 1986). Ezekben a vizsgálatokban a pénisz erekciót általában akkor számolták ki, amikor a pénisz a péniszburkolatból kilépett egy megfigyelővel, aki nem volt tudatában az adott kezeléseknek közvetlenül a kísérlet során, vagy később, megfigyelve a videokamerával rögzített videofelvételen rögzített kísérletet. Minden pénisz erekciós epizód az 0.5-1 min-ig tart, és általában pénisz ápolással és / vagy csípőhajlítással jár. Ezekben a patkányokban általában nem végeznek kísérleteket a szexuális élmény, életkor vagy annak megállapítása érdekében, hogy ezek a patkányok alacsony vagy magas válaszadókra oszthatók-e a különböző agyterületekbe injektált oxitocin pro-erektív hatására. Ez vonatkozik az egyéb neuropeptidek és a spontán pénisz erekciós epizódokat növelő gyógyszerek pro-erekciós hatására vonatkozó vizsgálatok többségére is, beleértve a dopamin agonistákat, az ingerlő aminosavakat, az ACTH-MSH-t, a hexarelin és a VGF-peptideket. Ezeknek a vegyületeknek a pro-erekciós hatását azonban többször megerősítették telemetriás módszerekkel, amelyek meghatározzák a pénisz erekció előfordulását az intracavernikus nyomás növekedésével, amely spontán vagy ezeknek a vegyületeknek különböző úton történő beadását követően, azaz szisztémásan, intracerebroventrikulárisan vagy \ t közvetlenül a specifikus agymagokba, a nyomást mikrotranszducer implantációja után közvetlenül a baromfi testbe (lásd Bernabè et al., 1999). A ventrális tegmentalis területen az amygdala ventralis aliculumja és a posteromedialis magja az oxitocinerg receptorok hatására is előidézi a pénisz erekcióját. Ez a ventrális tegmentális területből származó mesolimbikus dopaminerg neuronok aktiválódásához vezet, és a nukleáris accumbens héjához nyúlik ki, a sejtmagban lévő dopamin koncentrációjának növekedésével mérve, a nukleáris accumbens héjából nyert dializátumban, és az ebbe az extra-hypothalamus területekbe befecskendezett peptid által kiváltott erekciós válasz csökkenésével, amelyet a dopaminerg receptorok blokkolása után találtunk. (lásd alább). Az oxitocinerg receptorok stimulálásával aktivált mechanizmusok ezekben az agyi területeken, amelyek a mezolimbikus dopaminerg neuronok aktiválásához és a pénisz erekciójához vezetnek, a legjobban tisztázottak azok, amelyek a caudalis ventralis tegmentalis területen jelentkeznek. Valójában itt a farmakológiai és immunfluoreszcencia eredmények azt mutatják, hogy az oxitocin idegvégződések befolyásolják a dopaminerg neuronok sejtmagjait, amelyek a nukleinság magjába nyúlnak ki (Melis és munkatársai, 2007, 2009a; Succu és munkatársai, 2008). Ezen neuronok közül sok a nitrogén-monoxid szintázban és a guanilát-ciklázban gazdag. Az oxitocinerg receptorok stimulálása ezeknek a dopaminerg neuronoknak a sejtjeiben a nitrogén-monoxid szintáz aktiválódását okozza, ami a nitrogén-monoxid termelésének növekedéséhez vezet. A nitrogén-oxid viszont aktiválja a guanilát-ciklázt, ezáltal növelve a ciklikus GMP koncentrációját, \ t ami a mezolimbikus dopaminerg neuronok aktiválódásához és a dopamin felszabadulásához vezet a nukleáris accumbensben, az intra-cerebrális mikrodialízissel nyert nukleinsavakból származó dializátumban az extracelluláris dopamin növekedésével mérve (Succu et al., 2008 ). A sejtmagban felszabaduló dopamin viszont aktiválja a pénisz erekciójához vezető idegi útvonalakat. Ezt alátámasztja a dopamin receptor antagonisták haloperidol és / vagy a cisz-flupentixol a nukleáris akumbensbe injektált képessége, hogy csökkentsék a ventrális tegmentális terület oxitocin által kiváltott pénisz erekcióját (Succu et al., 2008). A pro-erekciós útvonalak egyike úgy tűnik, hogy aktiválja az incerto-hipotalamuszos dopaminerg neuronokat, különösen azokat, amelyek a paraventricularis oxitocinerg neuronok sejt-testeire vetülnek fel. Valójában a caudalis ventrális tegmentális területbe injektált oxitocin nemcsak a magvakban, hanem a paraventricularis magban is növeli az extracelluláris dopamint, és a paraventricularis magban lévő dopamin receptorok blokádja jelentősen csökkenti a ventrális tegmentális terület oxitocin által kiváltott pénisz erekcióját (Succu et al. 2007, 2008, Melis és munkatársai, 2007, 2009a). Ezeknek a magoknak a létezése dopamin-paraventricularis dopamin-paraventricularis oxitocin-ventralis tegmentalis terület oxitocin-dopamin kapcsolatai arra utal, hogy az apomorfin és a D4 receptor agonista PD 168077 pro-erektilis dózisának a paraventricularis magba injektált képessége növeli a sejten kívüli dopamin mennyiségét a sejtmagban (Succu és munkatársai, 2007). a ventrális tegmentális területbe adott d (CH2) 5Tyr (Me) -Orn8-vazotocin (Melis és munkatársai, 2009a, lásd még alább). Azonban további munkára van szükség ahhoz, hogy azonosítsuk azokat a neurális útvonalakat, amelyek összekapcsolják a sejtmagot az incerto-hypothalamic dopaminerg rendszerrel.
A mechanizmus, amellyel az oxitocin a pénisz erekcióját indukálja, és aktiválja a mezolimbikus dopaminerg neuronokat, amikor a ventralis aliculumba vagy az amygdala posteromedialis magába injektáljuk, csak részben értendő. Ezekben a területeken az oxitocin aktiválja saját receptorait, amelyek a nitrogén-monoxid szintáz aktiválásához vezetnek, ezáltal növelve a nitrogén-oxid termelését. A nitrogén-oxid viszont aktiválja az ismeretlen efferens vetüléseket, amelyek nyilvánvalóan növelik a glutamatergikus neurotranszmissziót a ventrális tegmentális területen. A glutaminsav ezután stimulálja a mezolimbikus dopaminerg neuronokat, amelyek a pénisz erekciójához vezetnek.Ezt a hipotézist elsősorban a ventrális szubiculumba injektált oxitocin képessége támogatja az extracelluláris glutaminsav növelésére a ventrális tegmentális területen. 3) és a nem versengő NMDA receptor antagonista (+) MK-801 injekciója a ventrális tegmentális területre, de nem a magba akumbol, hogy csökkentsék az oxitocin által indukált pénisz erekciót a ventralis aliculumba vagy a posteromedialis magba. (Melis és mtsai., 2009b). Jelenleg a ventrális szubiculum-oxitocin által kiváltott pénisz erekcióra vonatkozóan további részletek állnak rendelkezésre. Itt az oxitocin által kiváltott pénisz erekció másodlagosnak tűnik a nitrogén-monoxid-szintáz-tartalmú neuronok sejtjeiben található oxitocinerg receptorok aktiválásához. Ez a nitrogén-oxid termelésének növekedését okozza, amely aktiválja a glutamatergikus neurotranszmissziót úgy, hogy intercelluláris üzenetkülönbségként hat, mint a hosszú távú potencírozásra leírt mechanizmus (lásd Snyder, 1992; Southam és Garthwaite, 1993; Schuman és Madison, 2004; Schuman és Madison, XNUMX) . Ezzel a hipotézissel összhangban az oxitocin által kiváltott pénisz erekció egyidejűleg jelentkezik az extracelluláris glutaminsav növekedésével a ventralis szubiculumban, és az ingerlő aminosav-receptorok stimulálása a ventrális szubiculumban NMDA-val, pénisz erekciót vált ki. A glutaminsav viszont aktiválja a neurális efferens kiugrásokat, amelyek a mezostimbikus dopaminerg neuronok aktiválódásához vezetnek a ventrális tegmentális területen, amint azt a fentiekben leírtuk. Ha ezek a mechanizmusok az amygdala posteromedialis magjában is működőképesek, jelenleg nem ismert. Továbbá további vizsgálatok szükségesek annak igazolására, hogy az (1) oxitocinerg idegvégződések és receptorok a ventralis aliculumban és az amygdala posteromedialis magjában a nitrogén-monoxid-szintázt (2) tartalmazó neuronok sejtjeiben lokalizálódnak, ha ezek a neuronok végül az ingerlő aminosav (glutamatergikus) szinapszisok és (3) ellenőrzése alatt a nitrogén-oxid által aktivált jelzőrendszer azonosítására. Ezzel kapcsolatban figyelemre méltó, hogy az oxitocin azon képessége, hogy növelje a nitrogén-oxid szintetáz aktivitását a caudalis ventrális tegmentális területen lévő dopaminerg neuronok sejtjeiben, és még mindig ismeretlen neuronok a ventralis aliculumban és az amygdala posteromedialis magjában, emlékeztet az oxitocin azon képessége, hogy a paraventricularis magban lévő oxitocinerg neuronok sejtjeiben aktiválja a nitrogén-oxid szintetázt (Melis és munkatársai, 1997). Míg a ventralis tegmentalis területen a dopaminerg neuronok sejtjeiben a nitrogén-oxid megnövekedett termelése a neuronok aktiválásához vezet, a guanilát-cikláz aktiválásával és a ciklikus GMP növekedésével, ez nem fordul elő a paraventricularis magban. Ennek megfelelően a paraventricularis magba injektált 8-bróm-ciklusos GMP nem indukálja a pénisz erekcióját, miközben ezt a ventrális tegmentális területre injektáljuk. A nitrogén-oxid-ciklusos GMP-rendszerektől eltérő másik jelátviteli út a paraventricularis szinten az endogén és / vagy exogén nitrogén-oxid által létrehozott oxitocinerg neuronok aktiválásában (Melis és Argiolas, 1995b; Melis és munkatársai, 1997) aktiválódik. . 1). Másrészt úgy tűnik, hogy a ventrális tegmentális területen a ciklikus GMP kulcsszerepet játszik a mezolimbikus dopaminerg idegsejtek aktiválásában és a hím patkányok magjaiból származó dializátumban előforduló extra-celluláris dopamin növekedésében. a nem érintkező pénisz erekció kimutatására vagy kimutatására, ha nem hozzáférhető ovariektomizált, fogékony (ösztrogén + progeszteron kezelt) patkány jelenlétében van jelen. Ezekben a kísérleti körülmények között a nem érintő pénisz erekciót mutató hím patkányokban a sejten kívüli dopaminkoncentráció növekedése a vártnál nagyobb, és ezt a növekedést tovább növelik, bár csak mérsékelten, a caudal ventrális tegmentális területbe bevitt foszfodiészteráz-gátlókkal (Sanna et. al., 2009). Ezzel szemben a nonkontaktus erekciót nem mutató hím patkányoknál, amelyeknél nem tapasztaltak jelentős extracelluláris dopamin-növekedést a nucleus accumbensben, a caudalis ventrális tegmentális területbe adott foszfodiészteráz-gátlók hatására az extracelluláris dopamin-koncentráció jelentősen megnőtt, és nonkontaktus erekciókat figyeltek meg (Sanna et al., 2009).
A ventrális tegmentális területbe, a ventralis aliculumba és az amygdala posteromedialis kortikális magjába injektált oxitocin képessége a paraventricularis magba befecskendezett dopamin agonistákkal, a pénisz erekciójának indukálásához és a mesolimbikus dopaminerg neuronok aktiválásához érdemel néhány megjegyzést . Először is, a fent említettekhez hasonló mechanizmusok működhetnek, ha a pénisz erekciója fiziológiás kontextusban történik, mint például a kopuláció során (amikor kopula pénisz erekcióban fordul elő), vagy nem érintő pénisz erekció során. Ezek az erekció a feromon által közvetített pénisz erekció, amely nem különbözik a gyógyszerek vagy az oxitocin által kiváltott erektől, amelyek akkor fordulnak elő, amikor a szexuálisan hatásos hím patkányok hozzáférhetetlen fogékony (ovariektomizált ösztrogén + progeszteron alapozott) patkány jelenlétébe kerülnek, és szexuális arousal (Sachs, 1997, 2007). Sőt, bár ezek az eredmények nem igazolják, hogy ezeken a területeken az oxitocin szerepet játszik a fiziológiás kontextusban vagy a gyógyszer beadása után előforduló pénisz erekcióban, további erőt adnak a korai megállapításoknak, ami arra utal, hogy ezek az agyterületek azok közé tartoznak, amelyekben az oxitocin központi szerepet játszik, hogy fokozottan növelje az oxitocint. nemcsak a spontán pénisz erekciós epizódok, amelyeket az erektilis szerek után észleltek, hanem a férfi (és nő) szexuális viselkedésének javítása is (lásd Argiolas és Melis, 2004 és az ott található hivatkozások). Ennek megfelelően az oxitocin koncentrációja az apomorfin pro-erektilis dózisával kezelt hím patkányok hippokampuszában, egy klasszikus dopamin agonista (Melis és mtsai, 1990) és d (CH2) 5Tyr (Me) -Orn8-vazotocin hatására nő. nemcsak a kopulációs viselkedés (Argiolas et al., 1987a) károsodásában, hanem az apomorfin férfiak kopulációs viselkedésében (Argiolas és mtsai, 1987b) a szexuálisan hatásos hím patkányokban játszott elősegítő hatása, amely során kopula pénisz erekciójában előfordul. d (CH2) 5Tyr (Me) -Orn8-vazotocin szintén rendkívül hatásos a nem-érintkezéses erekció csökkentésében szexuálisan hatásos hím patkányokban, amikor az oldalsó kamrákba nanogrammban adják be, de nem a PVN-ba (Melis és mtsai, 1999a).
Másodszor, a mezolimbikus dopaminerg neuronok kulcsszerepet játszanak a természetes megerősítő ingerek, például az étel, a víz és a szexuális aktivitás motivációs és jutalmazó tulajdonságaiban (Fibiger és Phillips, 1988; Wise és Rompre, 1989; Everitt, 1990). Úgy gondolják, hogy ezekből a neuronokból felszabaduló dopamin közvetíti a természetes ingerek motivációs aspektusainak célirányos viselkedéssé való átalakulását, például szexuális aktivitás, szexuális partner keresése és a jutalom és kielégülés elérésére irányuló nemi közösülés esetén (Goto és Grace, 2005). Ennek megfelelően a szexuálisan potenciálra képes hím patkányok nucleus accumbenséből származó dializátumban a dopamin koncentrációja megnő egy hozzáférhetetlen, ovariektomizált, ösztrogénnel + progeszteronnal aktivált, fogékony nőstény patkánynak való kitettség során, és ez a növekedés még nagyobb volt, amikor a hím patkányt hagyták párosodni a fogékony nősténnyel (Pfaus és Everitt, 1995).
Harmadszor, a jelen eredmények alátámasztják azt a hipotézist, hogy a neurális kör a paraventricularis magot a ventrális tegmentális területhez közvetlenül vagy közvetve (az amygdala ventralis aliculumán és / vagy a posteromedialis kortikális magon keresztül) és az accumbens, valamint innen ismeretlen visszaállnak a paraventricularis magba, hogy ellenőrizzék a gerincvelő mediáló penész erekcióját kiváltó oxitocinerg neuronok és a ventrális tegmentális területre, a ventralis aliculumra és az amygdala posteromedialis kortikális magjára kivivő oxitocinerg neuronok aktivitását. dopaminerg neuronok aktivitása (4. ábra). Ez a komplex neurális áramkör szerepet játszhat a férfiak szexuális viselkedésének élettani (erekciós-ejakulációs) és előrejelző (motiváló és jutalmazó) aspektusainak szabályozásában szerepet játszó neurális tevékenységek integrálásában fiziológiai kontextusokban. Valójában az extracelluláris dopamin emelkedik a nukleáris accumbensben (Pfaus és Everitt, 1995) és a szexuálisan hatásos hím patkányok paraventricularis magjában, ha nem érhető, fogékony nőstény patkánynak van kitéve, amikor nem érintkezik az erekció, és még inkább, ha a kopuláció megengedett. pl. amikor a kopula penész erekciója következik be (Melis et al., 2003). Így, bár további vizsgálatokra van szükség az endogén oxitocinnak a ventrális tegmentális területen, a ventralis aliculumban és az amygdala-ban a nem érintkezéses erekció és a szexuális viselkedés során betöltött szerepének tisztázásához, akkor ésszerű lehet feltételezni, hogy ez a hipotetikus neurális kör, miközben hozzájárul a a szexuális viselkedés fogyasztói szempontjai, ugyanakkor aktiválhatja a mesolimbikus dopaminerg rendszert, amely neurális szubsztrátot biztosít a szexuális aktivitás előnyös tulajdonságainak magyarázatára (Everitt, 1990; Pfaus és Everitt, 1995). Ebben a tekintetben meg kell jegyezni, hogy a ventrális tegmentális területre injektált oxitocin által aktivált mesolimbikus dopaminerg rendszer ugyanaz, mint a visszaélésszerű gyógyszerek, például opiátok, kannabinoidok, amfetamin, kokain és alkohol (Tanda és mtsai, 1997), és azt találtuk, hogy az oxitocin képes csökkenteni a kokain, morfin, alkohol és kannabinoidok toleranciáját és függését (Kovacs és munkatársai, 1998; Cui és munkatársai, 2001). Összefoglalva, úgy tűnik, hogy nemcsak a ventrális tegmentális területen, hanem az amygdala ventrális aliculumában és a posteromedialis kortikális magban felszabaduló oxitocin is aktiválhatja a mezolimbikus dopaminerg neuronokat, amelyek részt vehetnek a szexuális aktivitás étvágygerjesztő és előnyös hatásaiban. . A mezolimbikus dopaminerg neuronok aktiválása közvetlen lehet, a mesolimbikus dopaminerg neuronok sejtjeiben lévő oxitocinerg receptorokon keresztül, vagy közvetve a glutaminsav neurotranszmisszió aktiválásával a ventrális tegmentális területen.
A sejtmagban felszabaduló dopamin a paraventricularis magban lévő incerto-hypothalamikus dopaminerg neuronok aktivitását idézi elő, ami vagy a pénisz erekcióját (a gerincvelőre ható oxitocinerg neuronok aktiválásával), vagy a szexuális motivációt és jutalmat (az oxitocinergikus aktiválás révén) okozhatja. a ventrális tegmentális területre, a ventralis aliculumra vagy az amygdala posteromedialis kortikális magjára vető neuronok). Mivel a dopamin szintén felszabadul a sejtmagban és a paraventricularis magban, amikor a pénisz erekciója fiziológiai kontextusokban történik (pl. Nem érintkező erekció és kopuláció) (Succu et al., 2007; Melis és mtsai, 2003, 2007), valószínű, hogy a központi oxitocinerg neuronok részt vesznek a mesolimbic és az incerto-hypothalamic dopaminerg rendszer közötti kölcsönhatást közvetítő neurális áramkörökben. Ezek a neurális áramkörök nemcsak a szexuális viselkedés fogyasztási fázisában játszhatnak szerepet (pl. Pénisz erekció és kopuláció), hanem szexuális motivációban, szexuális izgalomban és szexuális jutalomban is.
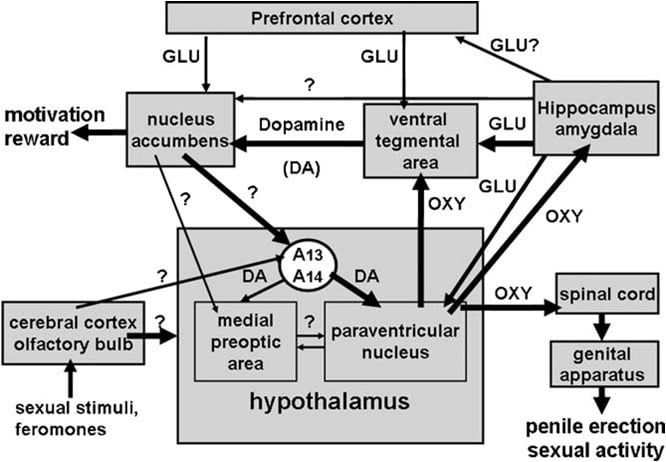
Egy hipotetikus oxitocint magában foglaló idegi áramkör sematikus ábrázolása, amely befolyásolja a szexuális motivációt, a jutalmazást és a szexuális teljesítményt, amint azt a jelen fejezet és a korábbi jelentések eredményei is sugallják. A paraventrikuláris magból származó és a gerincvelőbe vetülő oxitocinerg neuronok, amikor például dopamin és glutaminsav (de más neurotranszmitterek és/vagy neuropeptidek is) aktiválják őket, elősegítik a pénisz erekcióját és a szexuális teljesítményt azáltal, hogy aktiválják a gerincvelőbe vetülő oxitocinerg neuronokat. A paraventrikuláris magban található dopamin és glutaminsav (de neurotranszmitterek és neuropeptidek is) szintén aktiválják a ventrális tegmentális területre vetülő oxitocinerg neuronokat, ezáltal aktiválják a nucleus accumbensbe vetülő mezolimbikus dopaminerg neuronokat, modulálva a szexuális motivációt és jutalmat. A nucleus accumbensben (NA) felszabaduló dopamin viszont eddig ismeretlen idegpályákat aktivál, amelyek fokozzák az incerto-hypothalamusz dopaminerg neuronjainak aktivitását (Dahlstrom és Fuxe A13-A14 csoportjaiból származnak), amelyek többek között az oxitocinerg neuronokra, köztük a gerincvelőbe vetülőkre is ütköznek, ami pénisz erekcióhoz vezet. Ezt az áramkört az oxitocin nemcsak a caudalis ventrális tegmentális területbe, hanem a ventrális subiculumba és az amygdalába is injektálva aktiválhatja, amelyek szintén oxitocinerg beidegzést kapnak a paraventrikuláris magból, esetleg a ventrális tegmentális területbe irányuló közvetlen vagy közvetett glutamáterg efferensen keresztül, ami mind a szexuális motiváció, mind a pénisz erekciójának modulálásához vezet. Végül a fenti áramkört szexuális ingerek és feromonok is aktiválhatják, mivel az extracelluláris dopamin és glutaminsav szintje megnő a paraventrikuláris magban (és a mediális preoptikus területen) a feromon által közvetített, érintkezésmentes erekciók és közösülések során (a megfelelő hivatkozásokat lásd a Referenciák listájában).
Köszönetnyilvánítások Ezt a munkát részben az olasz egyetemi minisztérium és a kutatási támogatás AA és MRM támogatásával támogatta
Referenciák
Andersson, KE, 2001. A pénisz erekciójának farmakológiája. Pharmacol. Rev. 53, 417-450. Argiolas, A., 1994. A nitrogén-oxid a pénisz erekciójának központi közvetítője. Neurofarmakológia 33, 1339-1344. Argiolas, A., 1999. Neuropeptidek és szexuális viselkedés. Neurosci. Biobehav. Rev. 23, 1127-1142. Argiolas, A., Gessa, GL, 1991. Az oxitocin központi funkciói. Neurosci. Biobehav. Rev. 15, 217-231. Argiolas, A., Melis, MR, 1995. A pénisz erekció neuromodulációja: áttekintés a neurotranszmitterek és a neuropeptidek szerepéről. Prog. Neurobiol. 47, 235-255. Argiolas, A., Melis, MR, 2004. Az oxitocin és a paraventricularis mag szerepe a hím emlősök szexuális viselkedésében. Physiol. Behav. 83, 309-317. Argiolas, A., Melis, MR, 2005. A pénisz erekciójának központi ellenőrzése: a hypothalamus paraventricularis magjának szerepe. Prog. Neurobiol. 76, 1-21. Argiolas, A., Collu, M., Gessa, GL, Melis, MR, Serra, G., 1988. Az oxitocin antagonista d (CH2) 5Tyr (Me) -Orn8-vazotocin antagonizálja a hím kopulációs viselkedését patkányokban. E. J. Pharmacol. 149, 389-392. Argiolas, A., Collu, M., D'Aquila, P., Gessa, GL, Melis, MR, Serra, G., 1989. A patkányokban az oxitocin antagonista d (CH2) 5Tyr (Me) -Orn8-vasotocin megakadályozza a férfi kopulációs viselkedés apomorfin stimulációját. Pharmacol. Biochem. Behav. 33, 81-83. Argiolas, A., Melis, MR, Gessa, GL, 1985. Az intraventrikuláris oxitocin ásítást és pénisz erekciót vált ki patkányokban. E. J. Pharmacol. 117, 395-396. Argiolas, A., Melis, MR, Gessa, GL, 1986. Oxitocin: a pénisz erekciójának és ásatásának rendkívül erős indukálója hím patkányokban. E. J. Pharmacol. 130, 265-272. Argiolas, A., Melis, MR, Mauri, A., Gessa, GL, 1987a. A paraventricularis mag sérülése megakadályozza az apomorfin és oxitocin által kiváltott ásítást és pénisz erekciót, de az ACTH nem patkányokban. Brain Res. 421, 349-352. Argiolas, A., Melis, MR, Vargiu, L., Mauri, A., Gessa, GL, 1987b. d (CH2) 5Tyr (Me) -Orn8-vazotocin, erős oxitocin antagonista, antagonizálja az oxitocin és az apomorfin által kiváltott pénisz erekciót és ásítást, de nem az ACTH 1-24. E. J. Pharmacol. 134, 221-224. Argiolas, A., Melis, MR, Stancampiano, R., Gessa, GL, 1990. _-Conotoxin megakadályozza az apomorfin és az oxitocin által kiváltott pénisz erekciót és ásítást a hím patkányokban. Pharmacol. Biochem. Behav. 37, 253-257. Arletti, R., Bertolini, A., 1985. Az oxitocin nőstény patkányokban stimulálja a lordózis viselkedését. Neuropeptidek 6, 247-255. Arletti, R., Bazzani, C., Castelli, M., Bertolini, A., 1985. Az oxitocin javítja a férfiak kopulációs teljesítményét patkányokban. Horm. Behav. 19, 14-20. Arletti, R., Benelli, A., Bertolini, A., 1990. Az öregedő hím patkányok szexuális viselkedését az oxitocin stimulálja. E. J. Pharmacol. 179, 377-382. Arletti, R., Calzà, L., Giardino, L., Benelli, A., Cavazzutti, E., Bertolini, A., 1997. A szexuális impotencia az oxitocin termelésének csökkenésével és a hipotalamusz paraventricularis magjában fokozott termeléssel jár. Neurosci. Lett. 233, 65-68. Bancila, M., Giuliano, F., Rampin, O., Mailly, P., Brisorgueil, MJ, Clas, A., Verge, D., 2002. Bizonyíték a hypothalamus paraventricularis magjából való közvetlen vetítésre a patkányok erekciójának szabályozásában részt vevő nukleáris paragigantocellularis feltételezett szerotoninerg neuronjaira. E. J. Neurosci. 16, 1240-1249. Burnett, AL, Lowenstein, CJ, Bredt, DS, Chang, TSK, Snyder, SH, 1992. Nitrogén-oxid: a pénisz erekciójának fiziológiai közvetítője. Tudomány 257, 401-403. Baskerville, TA, Douglas, AJ, 2008. A dopamin és az oxitocin kölcsönhatása a szexuális viselkedés szabályozásában. Prog. Brain Res. 170, 277-289. Baskerville, TA, Allard, J., Wayman, C., Douglas, AJ, 2009. Dopamin-oxitocin kölcsönhatás a pénisz erekciójában. E. J. Neurosci. 30, 2151-2164. Benelli, A., Bertolini, A., Poggioli, R., Cavazzutti, E., Calzà, L., Giardino, L., Arletti, R., 1995. A nitrogén-oxid részt vesz a patkányok férfi szexuális viselkedésében. E. J. Pharmacol. 294, 505-510. Bernabè, J., Rampin, O., Sachs, BD, Giuliano, F., 1999. Intracavernikus nyomás az erekció során patkányokon: a telemetrikus felvételen alapuló integratív megközelítés. Am. J. Physiol. 276, R441-R449. Bitner, RS, Nikkel, AL, Otte, S., Martino, B., Barlow, EH, Bhatia, P., Stewart, AO, Brioni, JD, Decker, MW, Moreland, RB, 2006. Dopamin D4 receptor jelzése a patkány paraventricularis hypothalamikus magjában: bizonyíték a természetes kapcsolásra, amely azonnali korai génindukciót és mitogén aktivált protein kináz foszforilációt tartalmaz. Neurofarmakológia 50, 521-531. Brioni, JD, Moreland, RB, Cowart, M., Hsieh, GC, Stewart, AO, Hedlund, P., Donnelly-Roberts, DL, Nakane, M., Lynch 3rd., J., Kolasa, T., Polakowski , JS, Osinski, MA, Marsh, K., Andersson, KE, Sullivan, JP, 2004. A dopamin D4 receptorok aktiválása az ABT-724 által patkányokban a pénisz erekcióját idézi elő. Proc. Nati. Acad. Sci. USA 101, 6758-6763. Buijs, RM, 1978. Intra- és extra-hypothalamikus vazopresszin és oxitocin útvonalak a patkányokban. Cell Tissue Res. 192, 423-435. Buijs, RM, Geffard, M., Pool, CW, Hoorneman, EMD, 1984. A szupraopticus és paraventricularis mag dopaminerg beidegzése. Fény- és elektronmikroszkópos vizsgálat. Brain Res. 323, 65-72. Caldwell, JD, Prange, AJ, Pedersen, CA, 1986. Az oxitocin elősegíti az ösztrogénnel kezelt női patkányok szexuális fogékonyságát. Neuropeptidek 7, 175-189. Cameron, JL, Pomerantz, SM, Layden, LM, Amico, JA, 1992. Az oxitocin koncentrációjának dopaminerg stimulációja a hím és nőstény majmok plazmájában apomorfinnal és egy D2 receptor agonistával. J. Clin. Endocrinol. Metab. 75, 855-860. Canteras, NS, Simerly, RB, Swanson, LW, 1995. Az amygdala mediális magjával kapcsolatos előrejelzések szervezése: egy PHAL vizsgálat patkányban. J. Comp. Neurol. 360, 213-245. Carmichael, MS, Humbert, R., Dixen, J., Palmisano, G., Greeleaf, W., Davidson, JM, 1987. A plazma-oxitocin növeli az emberi szexuális választ. J. Clin. Endocrinol. Metab. 64, 27-31. Carter, CS, 1992. Oxitocin és szexuális viselkedés. Neurosci. Biobehav. Rev. 16, 131-144. Carter, CS, Lederhendler, II, Kirkpatrick, B., 1997. A New York-i Tudományos Akadémia társai interaktív neurobiológiája, Annals. 807. A New York-i Tudományos Akadémia, New York. Castelli, MP, Piras, AP, Melis, T., Succu, S., Sanna, F., Melis, MR, Collu, S., Ennas, MG, Diaz, G., Mackie, K., Argiolas, A. , 2007. Kannabinoid CB1 receptorok a paraventricularis magban és a pénisz erekció központi kontrollja: immunocitokémia, autoradiográfia és viselkedési vizsgálatok. Neurológiai tudomány 147, 197-206. Chen, KK, Chang, LS, 2003. Az ingerlő aminosav receptor agonisták hatása a pénisz erekcióra a hypothalamus paraventricularis magjába történő beadása után patkányokban. J. Ural. 62, 575-580. Chen, KK, Chan, JYH, Chang, LS, Chen, MT, Chang, SHH, 1992. A pénisz erekciója a patkányok hippocampális képződésének aktiválása után. Neurosci. Lett. 141, 218-222. Chen, KK, Chan, JYH, Chang, LS, 1999. Dopaminerg neurotranszmisszió a hypothalamus paraventricularis magjában a pénisz erekciójának központi szabályozásában a patkányban. J. Ural. 162, 237-242. Collins, GT, Truccone, A., Haji-Abdi, F., Newman, AH, Grundt, P., Rice, KC, Husbands, SM, Greedy, BM, Enguehard-Gueiffer, C., Gueiffer, A., Chen J., Wang, S., Katz, JL, Grandy, DK, Sunahara, RK, Woods, JH, 2009. A dopaminD2-szerű agonisták pro-erektív hatását a D3 receptor közvetíti patkányokban és egerekben. J. Pharmacol. Exp. Ther. 329, 210-217. Coolen, LM, Allard, J., Truitt, WA, McKenna, KE, 2004. Az ejakuláció központi szabályozása. Physiol. Behav. 83, 203-215. Cui, SS, Bowen, RC, Gu, GB, Hannesson, BK, Yu, PH, Zhang, X., 2001. A kannabinoid visszavonási szindróma megelőzése lítiummal: az oxitocinerg neuronok aktiválása. J. Neurosci. 21, 9867-9876. Dahlstrom, A., Fuxe, K., 1964. Bizonyíték a monoamin tartalmú neuronok létezéséről a központi idegrendszerben. I. A monoaminok kimutatása az agysejtek sejtjeiben. Acta Physiol. Scand. 62 (Kell. 232), 1-54. Depoortère, R., Bardin, L., Rodrigues, M., Abrial, E., Aliaga, M., Newman-Tancredi, A., 2009. A dopamin D2-szerű receptor agonisták által kiváltott pénisz erekció és ásítás patkányokon: a dopamin D2, de nem D3 és D4 receptorok hatása és hatása. Behav. Pharmacol. 20, 303-311. Domes, G., Heinrichs, M., Buchel, C., Braus, DF, Herpertz, SC, 2007. Az oxitocin gyengíti az érzelmi arcok amygdala-válaszait, függetlenül attól, hogy valencia. Biol. Pszichiátria 62, 11871190. Dominguez, J., Riolo, JV, Xu, Z., Hull, ME, 2001. A kopuláció medialis amygdala és a mediális preoptic dopamin felszabadulás szabályozása. J. Neurosci. 21, 349-355. Donaldson, ZR, Young, LJ, 2009. Oxitocin, vazopresszin és a szocializmus neurogenetikája. Tudomány 322, 900-904. Eaton, RG, Markowski, VF, Lumley, LA, Thompson, JT, Moses, J., Hull, EM, 1991. A paraventricularis magban lévő D2 receptorok szabályozzák a genitális válaszokat és a hím patkányok kopulációját. Pharmacol. Biochem. Behav. 39, 177-181. Ebner, K., Bosch, HL, Krömer, SA, Singewald, N., Neumann, ID, 2005. Az oxitocin felszabadulása a patkány központi amygdala-jában modulálja a stresszhatást okozó viselkedést és az excitáló aminosavak felszabadulását. Neuropszichofarmakológia 30, 223-230. Enguehard-Gueiffier, C., Hübner, H., El Hakmaoui, A., Allouchi, H., Gmeiner, P., Argiolas, A., Melis, MR, Gueiffier, A., 2006. 2 - [(4-fenilpiperazin-1-il) metil] imidazo (di) azinok szelektív D4-ligandumokként. Penisz erekció indukálása 2- [4- (2-metoxi-fenil) -piperazin-1-il-metil] -imidazo [1,2-a] piridin (PIP3EA) hatásos és szelektív D4 agonistával. J. Med. Chem. 49, 3938-3947. Everitt, BJ, 1990. Szexuális motiváció: a hím patkányok étvágytalansági és kopulációs reakcióinak idegi és viselkedési elemzése. Neurosci. Biobehav. Rev. 14, 217-232. Fibiger, HC, Phillips, AG, 1988. Mesokortikolimbikus dopamin rendszer és jutalom. Ann. N. Y. Acad. Sci. 5, 206-215. Francia, SJ, Totterdell, S., 2003. Az egyes mag-akumbens-projekciós neuronok patkányokban egyaránt kapnak basolaterális amygdala-t és ventrális subicularis afferenteket. Neurológiai tudomány 119, 19-31. 954 MR Melis, A. Argiolas / Neuroscience és Biobehavioral Reviews 35 (2011) 939-955 Freund-Mercier, MJ, Richard, P., 1981. Az oxitocin intraventrikuláris injekcióinak gerjesztő hatásai a patkány tejkivonási reflexére. Neurosci. Lett. 23, 193-198. Freund-Mercier, MJ, Richard, P., 1984. Az oxitocin neuronok oxitocin által a patkányon történő szoptatás során az oxitocin idegsejtjeinek megkönnyítő kontrollja. J. Physiol. (Lond.) 352, 447-466. Freund-Mercier, MJ, Stoeckel, ME, 1995. Somatodendritikus autoreceptorok az oxitocin neuronokon. In: Ivell, R., Russel, JA (Eds.), Oxytocin, Cellular és Molecular Approaches in Medicine and Research. Adv. Exp. Med. Biol., 365. Plenum Press, New York és London, pp. 185-194. Freund-Mercier, MJ, Stoeckel, ME, Palacios, JM, Pazos, JM, Richard, PH, Porte, A., 1987. Az 3H oxitocin kötőhelyek farmakológiai jellemzőit és anatómiai eloszlását a Wistar patkány agyban autoradiográfiával vizsgáltuk. Neurológiai tudomány 20, 599-614. Giuliano, F., Rampin, O., 2000. A pénisz erekciójának központi irányítása. Neurosci. Biobehav. Rev. 24, 517-533. Giuliano, F., Allard, J., 2001. Dopamin és szexuális funkció. INT. J. Impotencia Res. 13 (Kell. 3), 18-28. Giuliano, F., Rampin, O., 2004. Az erekció neurális ellenőrzése. Physiol. Behav. 83, 189-201. Giuliano, F., Bernabè, J., McKenna, KE, Longueville, F., Rampin, O., 2001. Az oxitocin gerinc proerektilis hatása az érzéstelenített patkányokban. J. vagyok Physiol. Regul. Integ. Comp. Physiol. 280, R1870-R1877. Goto, Y., Grace, AA, 2005. A nukleáris accumbens limbikus és kortikális meghajtásának dopaminerg modulációja a célirányos viselkedésben. Nat. Neurosci. 8, 805-812. Hawthorn, J., Ang, VT, Jenkins, JS, 1985. A patkány agyban és gerincvelőben a vazopresszin és az oxitocin hypothalamikus paraventricularis, supraopticus és suprachiasmatikus magjaiban bekövetkező elváltozások hatása. Brain Res. 346, 51-57. Heier, RF, Dolak, LA, Duncan, JN, Hyslop, DK, Lipton, MF, Martin, LJ, Mauragis, MA, Piercey, MF, Nichols, NF, Schreur, PJ, Smith, MW, Hold, MW, 1997. (R) -5,6-dihidro-N, N-dimetil-4H-imidazo [4,5,1-ij] kinolin-5-amin szintézise és biológiai aktivitása. J. Med. Chem. 40, 639-646. Hsieh, GC, Hollingsworth, PR, Martino, B., Chang, R., Terranova, MA, O'Neill, AB, Lynch, JJ, Moreland, RB, Donnelly-Roberts, DL, Kolasa, T., Mikusa, JP , McVey, JM, Marsh, KC, Sullivan, JP, Brioni, JD, 2004. A tudatos patkányokban a pénisz erekcióját szabályozó központi mechanizmusok: az apomorfin proerektilis hatásával kapcsolatos dopaminerg rendszerek. J. Pharmacol. Exp. Ther. 308, 330-338. Huang, PL, Dawson, TM, Bredt, DS, Snyder, SH, Fishman, MC, 1993. A neuron nitrogén-monoxid szintáz gén célzott megszakítása. 75, 1273-1286 cella. Huber, D., Veinante, P., Stoop, R., 2005. A vasopressin és az oxitocin kiemelkedő neuronális populációkat gerjeszt a központi amygdala-ban. Tudomány 308, 245-248. Hull, EM, Warner, RK, Bazzett, TJ, Eaton, RC, Thompson, JT, 1989. A D2 / D1 arány a mediális preoptikai területen befolyásolja a hím patkányok kopulációját. J. Pharmacol. Exp. Ther. 251, 422-427. Hull, EM, Du, J., Lorrain, DS, Matuszewich, L., 1995. Extra sejten kívüli dopamin a mediális preoptic területen: a szexuális motiváció és a kopuláció hormonális ellenőrzése. J. Neurosci. 15, 7465-7471. Hull, EM, Meisel, RL, Sachs, BD, 2002. Férfi szexuális viselkedés. In: Pfaff, DW, Arnold, AP, Etgen, AM, Fahrbach, SE, Rubin, RT (Ed.), Hormonok, Agy és viselkedés. Academic Press, New York, pp. 3-137. Hurlemann, R., Patin, A., Onur, OA, Cohen, MX, Baumgartner, T., Metzler, S., Dziobek, I., Gallinat, J., Wagner, M., Maier, W., Kendrick, KM, 2010. Az oxitocin fokozza az emberben az amygdala-függő, társadalmilag megerősített tanulást és érzelmi empátiát. J. Neurosci. 30, 4999-5007. Ivell, R., Russel, JA, 1995. Oxitocin: Celluláris és molekuláris megközelítések az orvostudományban és a kutatásban. A kísérleti gyógyászat és a biológia előrehaladása, vol. 395. Plenum Press, New York. Kelley, AE, Domesick, VB, 1982. A hippokampusz képződésének vetülete a patkányban a magba akumbensen: egy anterográd és retrográd-torma peroxidáz vizsgálat. Neurológiai tudomány 7, 2321-2335. Kimura, Y., Naitou, Y., Wanibuchi, F., Yamaguchi, T., 2008. Az 5-HT (2C) receptor aktiválás az apomorfin, az oxitocin és a melanotan-II proerektilis hatásainak közös mechanizmusa patkányokon. E. J. Pharmacol. 589, 157-162. Kondo, Y., Sachs, BD, Sakuma, Y., 1998. A középső amygdala jelentősége a patkány pénisz erekcióban, melyet az ingerelt nőstények távoli ingerek okoznak. Behav. Brain Res. 91, 215-222. Kovacs, GL, Sarnyai, Z., Szabo, G., 1998. Oxitocin és függőség: felülvizsgálat. Pszichoneuroendokrinológia 23, 945-962. Lee, HJ, Macbeth, AH, Pagani, JH, Scott Young 3rd, W., 2009. Oxitocin: az élet nagy segítője. Prog. Neurobiol. 88, 127-151. Lindvall, O., Bjorklund, A., Skagerberg, G., 1984. A dopamin terminális rendszerek szelektív istokémiai bemutatása patkány di- és telencephalonban: új bizonyítékok a hypothalamus neurosecretory magok dopaminerg innervációjára. Brain Res. 306, 19-30. Liu, YC, Salamone, JD, Sachs, BD, 1997. A hím patkányokban a hypothalamus paraventricularis magjának sérülése után csökkent szexuális válasz. Behav. Neurosci. 111, 1361-1367. Löber, S., Tschammer, N., Hübner, H., Melis, MR, Argiolas, A., Gmeiner, P., 2009. Az azulén-keretrendszer új bioiszoszterként: erős dopamin-D4-receptor ligandumok kialakítása, amelyek a pénisz erekcióját indukálják. Chem. Med. Chem. 4, 325-328. McCleskey, EW, Fox, AP, Feldman, DH, Cruz, LJ, Olivera, BM, Tsien, RW, Yoshikami, D., 1987. _-Conotoxin: a neuronok specifikus kalciumcsatornáinak közvetlen és tartós blokkolása, de nem izom. Prot. Nat. Acad. Sci. USA 84, 4327-4331. McKenna, KE, 2000. Néhány javaslat a központi idegrendszer szabályozására a pénisz erekciójának szabályozására vonatkozóan. Neurosci. Biobehav. Rev. 24, 535-540. Marson, L., McKenna, KE, 1992. Az 5-hidroxitriptamin szerepe a gerincvelői szexuális reflexek csökkenő gátlásában. Exp. Brain Res. 88, 313-318. Marson, L., McKenna, KE, 1996. Az izchiocavernosus és a bulbospongiosus izmok szabályozásában részt vevő központi idegrendszeri sejtek: transzneuronális nyomkövetési vizsgálat pszeudorabies vírussal. J. Comp. Neurol. 374, 161-179. Meisel, RL, Sachs, BD, 1994. A férfi szexuális viselkedés fiziológiája. In: Knobil, E., Neil, J. (Szerk.), A reprodukciós élettan, Vol. 2, második kiadás. Raven Press, New York, pp. 3-96. Melin, P., Kihlstrom, JE, 1963. Az oxitocin hatása a hím nyulak szexuális viselkedésére. Endokrinológia 73, 433-435. Melis, MR, Argiolas, A., 1995a. Dopamin és szexuális viselkedés. Neurosci. Biobehav. Rev. 19, 19-38. Melis, MR, Argiolas, A., 1995b. A nitrogén-oxid donorok pénisz erekciót és ásítást indukálnak, amikor a hím patkányok központi idegrendszerébe injektálják. E. J. Pharmacol. 294, 1-9. Melis, MR, Argiolas, A., 2003. Központi oxitocinerg neurotranszmisszió: a pszichogén erekciós diszfunkció terápiájának célpontja. Akt. Kábítószer-célok 4, 55-66. Melis, MR, Argiolas, A., Gessa, GL, 1986. Oxitocin által indukált ásítás és pénisz erekció: az agy hatásának helye. Brain Res. 398, 259-265. Melis, MR, Argiolas, A., Gessa, GL, 1987. Apomorfin által kiváltott ásítás és pénisz erekció: az agy hatásának helye. Brain Res. 415, 98-104. Melis, MR, Argiolas, A., Gessa, GL, 1989a. Az apomorfin növeli a plazma oxitocin szintjét patkányokban. Neurosci. Lett. 98, 351-355. Melis, MR, Argiolas, A., Gessa, GL, 1989b. Bizonyíték arra, hogy az apomorfin erekciót és ásítást idéz elő az oxitocin központi idegrendszerben való felszabadításával. E. J. Phamacoí. 164, 565-570. Melis, MR, Argiolas, A., Stancampiano, R., Gessa, GL, 1990. Az apomorfin hatása az oxitocin koncentrációjára a hím patkányok különböző agyterületein és plazmájában. E. J. Pharmacol. 182, 101-107. Melis, MR, Mauri, A., Argiolas, A., 1994a. Apomorfin és oxitocin által kiváltott pénisz erekció és ásítás intakt és kasztrált hím patkányokban: szexuális szteroidok hatása. Neuroendokrinológia 59, 349-354. Melis, MR, Stancampiano, R., Argiolas, A., 1994b. A paraventricularis NMDA injekciók által kiváltott pénisz erekciót és ásítást az oxitocin közvetíti. Pharmacol. Biochem. Behav. 48, 203-207. Melis, MR, Stancampiano, R., Argiolas, A., 1994c. Az apomorfin és az oxitocin által kiváltott pénisz erekció és ásítás megelőzése NG-nitro-l-arginin-metil-észterrel: az agy hatásának helye. Pharmacol. Biochem. Behav. 48, 799-804. Melis, MR, Succu, S., Argiolas, A., 1996. A dopamin agonisták növelik a nitrogén-oxid termelését a hypothalamus paraventricularis magjában: korreláció a pénisz erekciójával és ásításával. E. J. Neurosci. 8, 2056-2063. Melis, MR, Succu, S., Iannucci, U., Argiolas, A., 1997. Az oxitocin növeli a nitrogén-oxid termelését a hypothalamus paraventricularis magjában: korreláció a pénisz erekciójával és ásításával. Reg. 69, 105-112 peptidek. Melis, MR, Succu, S., Mauri, A., Argiolas, A., 1998. A hím patkányok hypothalamusának paraventricularis magjában megnövekedett a nitrogén-monoxid-képződés a nem érintő pénisz erekció és kopuláció során. E. J. Neurosci. 10, 1968-1974. Melis, MR, Spano, MS, Succu, S., Argiolas, A., 1999a. Az oxitocin antagonista d (CH2) 5Tyr (Me) 2-Orn8-vazotocin csökkenti a érintés nélküli pénisz erekciót hím patkányokban. Neurosci. Lett. 265, 171-174. Melis, MR, Succu, S., Spano, MS, Argiolas, A., 1999b. A hipotalamusz paraventricularis magába befecskendezett morfin megakadályozza az érintkezés nélküli erekciót és rontja a kopulációt: a nitrogén-oxid bevonása. E. J. Neurosci. 11, 1857-1864. Melis, MR, Spano, MS, Succu, S., Argiolas, A., 2000. A gerjesztő aminosav, a dopamin és az oxitocin receptor antagonisták hatása nem érintő pénisz erekcióra és paraventricularis nitrogén-oxid termelésre hím patkányokban. Behav. Neurosci. 114, 849-857. Melis, MR, Succu, S., Mascia, MS, Cortis, L., Argiolas, A., 2003. A sejten kívüli dopamin nő a hím patkányok paraventricularis magjában szexuális tevékenység során. E. J. Neurosci. 17, 1266-1272. Melis, MR, Succu, S., Mascia, MS, Argiolas, A., 2004a. A hím patkányok paraventricularis magjában lévő kannabinoid CB1receptorok antagonizmusa pénisz erekciót vált ki. Neurosci. Lett. 359, 17-20. Melis, MR, Succu, S., Mascia, MS, Cortis, L., Argiolas, A., 2004b. A sejten kívüli excitációs aminosavak a hím patkányok paraventricularis magjában emelkednek a szexuális aktivitás során: az NMDA receptorok fő szerepe az erekciós funkcióban. E. J. Neurosci. 19, 2569-2575. Melis, MR, Succu, S., Mascia, MS, Argiolas, A., 2005. A PD-168,077, a szelektív dopamin D4 receptor agonista, a hím patkányok paraventricularis magába injektált pénisz erekciót vált ki. Neurosci. Lett. 379, 59-62. Melis, MR, Succu, S., Mascia, MS, Sanna, F., Melis, T., Succu, S., Castelli, MP, Argiolas, A., 2006a. SR 141716A által kiváltott pénisz erekció hím patkányokban: paraventricularis glutaminsav és nitrogén-oxid bevonása. Neurofarmakológia 50, 219-228. Melis, MR, Succu, S., Sanna, F., Mascia, MS, Melis, T., Enguehard-Gueiffier, C., Hubner, H., Gmenier, P., Gueiffier, A., Argiolas, A. 2006b. PIP3EA és PD168077, két szelektív dopamin D4 receptor agonista, pénisz erekciót váltanak ki hím patkányokban: az agyban fellépő hely és mechanizmus. E. J. Neurosci. 24, 2021-2030. Melis, MR, Melis, T., Cocco, C., Succu, S., Sanna, F., Pillolla, G., Boi, A., Ferri, GL, Argiolas, A., 2007. A ventrális tegmentális területre injektált oxitocin pénisz erekciót vált ki, és növeli az extracelluláris dopamint a magban. Melis, A. Argiolas / Idegtudományi és Bio-viselkedési vélemények 35 (2011) 939-955 955 és a hím patkányok hypothalamusának paraventricularis magja. E. J. Neurosci. 26, 1026-1035. Melis, MR, Sanna, F., Succu, S., Zarone, P., Boi, A., Argiolas, A., 2009a. Az oxitocin szerepe a férfi patkány szexuális viselkedésének előrejelző és fogyasztó fázisában. In: Jastrow, H., Feuerbach, D. (Szerk.), Oxitocin kutatási kézikönyv: Szintézis, tárolás és kiadás, akciók és gyógyszerformák. Nova Publishers Inc., New York, USA, pp. 109-125. Melis, MR, Succu, S., Sanna, F., Boi, A., Argiolas, A., 2009b. Az amygdala ventrális szubiculumába vagy a posteromedialis kortikális magba injektált oxitocin pénisz erekciót vált ki, és növeli az extracelluláris dopamint a hím patkányok magjában. E. J. Neurosci. 30, 1349-1357. Melis, MR, Succu, S., Cocco, C., Caboni, E., Sanna, F., Boi, A., Ferri, GL, Argiolas, A., 2010. Az oxitocin a ventralis subiculumba való injekciózáskor a pénisz erekcióját idézi elő: a nitrogén-oxid és a glutaminsav szerepe. Neurofarmakológia 58, 1153-1160. Moreland, RB, Nakane, M., Donnelly-Roberts, DL, Miller, LN, Chang, R., Uchic, ME, Terranova, MA, Gubbins, EJ, Helfrich, RJ, Namovic, MT, El-Kouhen, OF, Mesterek, JN, Brioni, JD, 2004. A humán dopamin D (2) -szerű receptor-stabil sejtvonalak összehasonlítása a Galpha-n (qo5) keresztül kalcium fluxussal összekapcsolva. Biochem. Pharmacol. 68, 761-772. Moos, F., Freund-Mercier, MJ, Guerne, Y., Guerne, JM, Stoeckel, ME, Richard, P., 1984. Az oxitocin és a vazopresszin felszabadulása magnocelluláris magokkal in vitro: az oxitocin sajátos felszabadulásának specifikus elősegítő hatása. J. Endocrinol. 102, 63-72. Murphy, MR, Seckl, JR, Burton, S., Checkley, SA, Lightman, SL, 1987. Az oxitocin és a vazopresszin szekréció változása a férfiak szexuális aktivitása során. J. Clin. Endocrinol. Metab. 65, 738-741. Nishimori, K., Young, LJ, Guo, Q., Wang, Z., Insel, TR, Matzuk, MM, 1996. Oxitocin szükséges az ápoláshoz, de nem szükséges a szülésre vagy a reproduktív viselkedésre. Proc. Nati. Acad. Sci. USA 93, 11699-11704. Patel, S., Freedman, S., Chapman, KL, Emms, F., Fletcher, AE, Knowles, M., Marwood, R., Mccallister, G., Myers, J., Curtis, J., Kulagowski, J. JJ, Leeson, PD, Ridgill, M., Graham, M., Matheson, S., Rathbone, D., Watt, AP, Bristow, LJ, Rupniak, NM, Baskin, E., Lynch, JJ, Ragan, CI , 1997. Az L 745,870, a dopamin D4 receptorhoz nagy affinitással rendelkező szelektív antagonista biológiai profilja. J. Pharmacol. Exp. Ther. 283, 636-647. Pedersen, CA, Caldwell, JD, Jirikowski, GF, Insel, TR, 1992. Oxytocin az anyai, szexuális és társadalmi viselkedésben, a New York-i Tudományos Akadémia Annáljai, kötet. 652. A New York-i Tudományos Akadémia, New York. Petrovic, P., Kalisch, R., Singer, T., Dolan, RJ, 2008. Az oxitocin gyengíti a kondicionált arcok és az amygdala aktivitásának affektív értékelését. J. Neurosci. 28, 6607-6615. Pfaus, JG, Everitt, BJ, 1995. A szexuális viselkedés pszichofarmakológiája. In: Knobil, FE, Kupfer, DJ (Szerk.), Pszichofarmakológia: a haladás negyedik generációja. Raven Press, New York, pp. 742-758. Rajfer, J., Aronson, WJ, Bush, PA, Dorey, FJ, Ignarro, LJ, 1992. Nitrogén-oxid, mint a korpuszpirosodás relaxációjának közvetítője a nonadrenerg, noncholinerg neurotranszmisszió hatására. N. Engl. J. Med. 326, 90-94. Roeling, TAP, Van Erp, AMM, Meelis, W., Kruk, MR, Veening, JG, 1991. Az NMDA viselkedési hatásai a patkány hypothalamikus paraventricularis magjába injektálva. Brain Res. 550, 220-224. Sachs, BD, 1997. Az erekció hím patkányoknál az ösztrát nőkből származó levegő illatával vált ki. Physiol. Behav. 62, 921-924. Sachs, BD, 2000. Az erekciós funkció, a merevedési zavar és a szexuális izgalom fiziológiájának és osztályozásának kontextusos megközelítése. Neurosci. Biobehav. Rev. 24, 541-560. Sachs, BD, 2007. A férfi szexuális izgalom kontextus szerinti meghatározása. Horm. Behav. 51, 569-578. Sanchez, F., Alonso, JR, Arevalo, R., Blanco, E., Aijon, J., Vazquez, R., 1994. A NADPH-diapóráz és a vazopresszin és az oxitocin együttes jelenléte a patkány hipotalamuszos magnocelluláris neuroszekréciós magjában. Cell Tissue Res. 276, 31-34. Sanna, F., Succu, S., Boi, A., Melis, MR, Argiolas, A., 2009. A foszfodiészteráz 5 inhibitorok megkönnyítik a hím patkányok érintkezés nélküli erekcióját: az agyban fellépő hatásterület és hatásmechanizmus. J. Szex. Med. 6, 2680-2689. Saphier, D., Feldman, S., 1987. A szeptális és hippocampális ingerek hatása a paraventricularis nukleáris neuronokra. Neurológiai tudomány 20, 749-755. Sato-Suzuki, I., Kita, I., Oguri, M., Arita, H., 1998. A patkány paraventricularis magjának elektromos és kémiai stimulálása által indukált sztereotípiás ásítás. J. Neurophy. 80, 2765-2775. Schuman, EM, Madison, DV, 1994. Nitrogén-oxid és szinaptikus funkció. Ann. Rev. Neurosci. 17, 153-183. Snyder, SH, 1992. Nitrogén-oxid: először egy új osztályban a neurotranszmitterek? Tudomány 254, 494-496. Sofroniew, MV, 1983. Vasopressin és oxitocin az emlősök agyában és a gerincvelőben. Trendek Neurosci. 6, 467-472. Sokoloff, P., Schwartz, JC, 1995. Új dopamin receptorok fél évtizeddel később. Trends Pharmacol. Sci. 16, 270-275. Southam, E., Garthwaite, J., 1993. A nitrogén-oxid-ciklusos GMP jelátviteli út patkány agyban. Neurofarmakológia 32, 1267-1277. Stancampiano, R., Melis, MR, Argiolas, A., 1994. Az 5-HT1c agonisták által kiváltott pénisz erekció és ásítás hím patkányokban: kapcsolat a dopaminerg és oxitocinerg transzmisszióval. E. J. Pharmacol. 261, 149-155. Succu, S., Mascia, MS, Sanna, F., Melis, T., Argiolas, A., Melis, MR, 2006. Az SR 1A kannabinoid CB141716 receptor antagonista a hím patkányok paraventricularis magjában növekszik az extracelluláris glutaminsav növelésével. Behav. Brain Res. 169, 274-281. Succu, S., Sanna, F., Melis, T., Boi, A., Argiolas, A., Melis, MR, 2007. A hím patkányok hypothalamusának paraventricularis magjában a dopamin receptorok stimulálása a pénisz erekcióját idézi elő, és növeli a sejten kívüli dopamint a sejtmagban: a központi oxitocin bevonása. Neurofarmakológia 52, 1034-1043. Succu, S., Sanna, F., Cocco, C., Melis, T., Boi, A., Ferri, GL, Argiolas, A., Melis, MR, 2008. Az oxitocin a hím patkányok ventrális tegmentális területére injektálva pénisz erekciót idéz elő: a nitrogén-oxid és a ciklikus GMP szerepe. E. J. Neurosci. 28, 813-821. Tanda, G., Pontieri, FE, Di Chiara, G., 1997. Kannabinoidok és a mezolimbikus dopaminátvitel heroin aktiválása egy gyakori mu1 opioid receptor mechanizmus segítségével. Tudomány 276, 2048-2050. Tang, Y., Rampin, O., Calas, A., Facchinetti, P., Giuliano, F., 1998. A hím patkányokban a pénisz erekcióját szabályozó azonosított lumbosacrális magok oxitocinerg és szerotoninerg beidegzése. Neurológiai tudomány 82, 241-254. Theodosis, DT, 1985. Az oxitocin-immunreaktív terminálok szinapszisznak az oxitocin neuronokra a szupraoptikus magokban. Természet (London) 313, 682-684. Tindall, JS, 1974. Az oxitocin felszabadulását okozó stimulusok. In: Geiger, SR, Knobil, E., Sawyer, WH, Greef, R., Astwood, EB (Szerk.), Fiziológiai kézikönyv. Szekta. 7, Endocrinology, vol. IV. Amerikai Fiziológiai Társaság, Washington DC, pp. 257-267. Torres, G., Lee, S., Rivier, C., 1993. A patkány hypothalamikus nitrogén-monoxid szintáz szintje és a neuropeptidekkel való kolokalizáció. Mol. Sejt. Neurosci. 4, 155-163. Uhl-Bronner, S., Waltisperger, E., Martinez-Lorenzana, G., Condes, LM, Freund-Mercier, MJ, 2005. Az oxitocin kötőhelyek szexuálisan dimorf expressziója a patkány előtti és gerincvelőjében. Neurológiai tudomány 135, 147-154. Vaccari, C., Lolait, SJ, Ostrowski, NL, 1998. A vazopresszin V1b és az oxitocin receptor messenger ribonukleinsavak összehasonlító eloszlása az agyban. Endokrinológia 139, 5015-5033. Van Den Pol, A., 1991. Glutamát és aszpartát immunreaktivitás hipotalamusz preszinaptikus axonokban. J. Neurosci. 11, 2087-2101. Veronneau-Longueville, F., Rampin, O., Freund-Mercier, MJ, Tang, Y., Calas, A., Marson, L., McKenna, KE, Stoeckel, ME, Benoit, G., Giuliano, F. , 1999. A patkányokban a pénisz erekcióját szabályozó autonóm magok oxitocinerg innervációja. Neurológiai tudomány 93, 1437-1447. Vincent, SR, Kimura, H., 1992. A nitrogén-monoxid szintáz hisztokémiai feltérképezése a patkány agyban. Neurológiai tudomány 46, 755-784. Wagner, CK, Clemens, LG, 1993. Neurofizintartalmú út a hipotalamusz paraventricularis magjától egy szexuálisan dimorfikus motormaghoz az ágyéki gerincvelőben. J. Comp. Neurol. 336, 106-116. Winslow, JT, Insel, TR, 1991. A hím mókus majmok párjaiban a társadalmi státus meghatározza a központi oxitocin adagolásra adott viselkedési választ. J. Neurosci. 11, 2032-2038. Wise, RA, Rompre, P.-P., 1989. Agy dopamin és jutalom. Ann. Rev. Psychol. 40, 191-225. Witt, DM, Insel, TR, 1994. A férfi szexuális viselkedés aktiválja a c-fos-szerű fehérjét az oxitocin neuronokban a hypothalamus paraventricularis magjában. J. Neuroendocrinol. 6, 13-18. Witter, MP, 2006. A patkány alsó részének kapcsolatai: topográfia az oszlopos és lamináris szervezethez viszonyítva. Behav Brain Res. 174, 251-264. Woodruff, GN, Foster, AC, Gill, R., Kemp, JA, Wong, EH, Iversen, LL, 1987. Az MK-801 és az N-metil-d-aszpartát receptorok közötti kölcsönhatás: funkcionális következmények. Neurofarmakológia 26, 903-909. Yamashita, H., Shigeru, O., Inenaga, K., Kasai, M., Uesugi, S., Kannan, H., Kaneko, T., 1987. Az oxitocin túlnyomórészt feltételezett oxitocin neuronokat gerjeszt a patkány szupraoptikus magjában in vitro. Brain Res. 416, 364-368. Yells, DP, Hendricks, SE, Prendergast, MA, 1992. A nucleus paragigantocellularis elváltozásai: a hím patkányok párzási viselkedésére gyakorolt hatás. Brain Res. 596, 73-79. Young, WS, Shepard, E., Amico, J., Hennighausen, L., LaMarca, ME, McKinney, C., Ginns, EI, 1996. Az egér oxitocin hiánya megakadályozza a tej kilökődését, de nem a termékenységet vagy a szülést. J. Neuroendocrinol. 8, 847-854. Zahran, AR, Vachon, P., Courtois, F., Carrier, S., 2000. Az intracavernikus pénisznyomás növekedése az érzéstelenített patkányok hypothalamus paraventricularis magjában lévő gerjesztő aminosav receptor agonisták beadása után. J. Ural. 164, 1793-1797.