KOMEN YBOP: Kesan Coolidge berada di sebalik kehebatan pornografi Internet. Kesan Coolidge adalah fenomena yang dilihat pada spesies mamalia di mana lelaki (dan pada tahap yang lebih rendah wanita) menunjukkan minat seksual yang diperbaharui jika diperkenalkan kepada pasangan seksual yang baru, walaupun setelah menolak hubungan seks dari pasangan seksual sebelumnya tetapi masih ada. Kebaruan seksual mengatasi kebiasaan ini dengan kegembiraan yang baru disebabkan oleh dopamin yang lebih tinggi. Aliran kebaruan yang berterusan adalah yang menjadikan pornografi Internet sangat berbeza dengan pornografi masa lalu.
- Dennis F. Fiorino,
- Ariane Coury, dan
- Anthony G. Phillips
-
Jurnal Neurosains, 15 Jun 1997, 17 (12): 4849-4855;
Abstrak
Kesan Coolidge menerangkan pengekalan tingkah laku seksual dalam haiwan yang "seksual memuaskan" sebagai tindak balas kepada pasangan baru yang diterima. Memandangkan peranan sistem mesoprak dopamin (DA) dalam inisiasi dan penyelenggaraan tingkah laku yang bermotivasi, mikrodialisis digunakan untuk memantau transmisi nukleus accumbens (NAC) semasa pengekalan, ketegangan seksual, dan pemulihan tingkah laku seksual. Dalam persetujuan dengan laporan terdahulu, pembentangan wanita estrous di sebalik skrin dan perkongsian dikaitkan dengan peningkatan ketara dalam NAC DA efflux. Pemulangan kepekatan NAC DA kepada nilai asas bertepatan dengan tempoh ketegangan seksual, walaupun kepekatan metabolit DA, asid dihydroxyphenylacetic dan asid homovanillic, kekal tinggi. Pembentangan seorang wanita yang menerima novel yang baru di belakang skrin menghasilkan sedikit peningkatan dalam NAC DA, yang ditambah dengan ketara semasa pembaharuan yang diperbaharui dengan novel wanita. Data yang ada sekarang menunjukkan bahawa sifat rangsangan dari seorang wanita yang baru diterima boleh meningkatkan transmisi NAC DA dalam tikus jantan yang seksual, dan ini pula berkaitan dengan pengekalan kelakuan seksual.
Pengenalan
Seekor tikus jantan yang telah bersetubuh sehingga kenyang boleh diinduksi untuk mengawan semula jika betina awal digantikan dengan betina reseptif baharu. Ini dikenali sebagai kesan Coolidge dan telah diperhatikan dalam beberapa spesies mamalia ( Wilson et al., 1963 ). Faktor umum seperti keletihan atau kemurungan motorik tidak mencukupi untuk menjelaskan keadaan kenyang seksual yang ketara, kerana rangsangan daripada betina baharu masih boleh mendorong persetubuhan. Kenyang seksual juga boleh "diterbalikkan" secara farmakologi, pada tahap yang ketara, dengan pemberian pelbagai ubat yang boleh bertindak pada sistem neurotransmiter yang berbeza. Ubat-ubatan ini termasuk yohimbine, 8-OH-DPAT ( Rodriguez-Manzo dan Fernandez-Guasti, 1994 , 1995a ), nalaxone ( Pfaus dan Gorzalka, 1987 ; Rodriguez-Manzo dan Fernandez-Guasti, 1995a , b ), dan apomorfin ( Mas et al., 1995c ). Walaupun tindakan periferal ubat-ubatan ini tidak dapat diketepikan (contohnya, kesan adrenergik pada fungsi erektil), kesan pada mekanisme pusat yang mendasari rasa kenyang seksual telah dicadangkan berdasarkan eksperimen lesi noradrenergik pusat terpilih ( Rodriguez-Manzo dan Fernandez-Guasti, 1995a ) dan eksperimen mikrodialisis yang memantau metabolisme dopaminergik di kawasan preoptik medial ( Mas et al., 1995a , b ).
Memandangkan mekanisme pusat mungkin menjadi perantara dalam memulakan semula ciri tingkah laku seksual yang menjadi ciri kesan Coolidge, calon yang mungkin ialah sistem dopamin mesolimbik (DA), yang diunjurkan dari kawasan tegmental ventral ke NAC. DA mesolimbik nampaknya bertindak sebagai modulator utama dalam proses integratif kompleks yang melibatkan penilaian rangsangan persekitaran, seperti isyarat daripada wanita yang menerima secara seksual, dan organisasi tingkah laku yang diarahkan oleh matlamat, termasuk kopulasi ( Fibiger dan Phillips, 1986 ; Blackburn et al., 1992 ; Phillips et al., 1992 ; LeMoal, 1995 ; Salamone, 1996 ).
Walaupun neuron DA otak tengah bertindak balas terhadap ganjaran dan isyarat utama yang meramalkan ganjaran, rangsangan persekitaran baharu atau yang tidak dapat diramalkan mendorong pengaktifan neuron paling kuat melalui sesi latihan berulang ( Fabre et al., 1983 ; Schultz, 1992 ; Mirenowicz dan Schultz, 1994 ). Terdapat banyak bukti yang menyokong peranan fasilitator penting untuk DA mesolimbik dalam permulaan dan pengekalan tingkah laku seksual tikus ( Pfaus dan Everitt, 1995 ), dan beberapa kajian mikrodialisis melaporkan peningkatan dalam efluks NAC DA semasa fasa selera makan dan penyempurnaan tingkah laku seksual lelaki ( Pfaus et al., 1990 ; Pleim et al., 1990 ; Damsma et al., 1992 ; Wenkstern et al., 1993 ; Fumero et al., 1994 ; Mas et al., 1995b ). Walau bagaimanapun, terdapat sedikit data mengenai korelasi neurokimia bagi kepuasan seksual dan permulaan semula tingkah laku seksual. Penggunaan mikrodialisis in vivo untuk memantau neurotransmisi DA mesolimbik semasa kesan Coolidge memberikan peluang unik untuk mengkaji peranan NAC DA dalam sanggama, kepuasan seksual dan permulaan semula sanggama.
Percubaan microdialysis dilakukan untuk menentukan perkara berikut: (1) sama ada permulaan keseronokan seksual disertai dengan pemulangan kepekatan DA ekstrasel dalam NAC kepada nilai-nilai preopulation atau di bawah, dan (2) sama ada pengembalian semula kelakuan copulatory dalam " seksual "tikus lelaki dengan wanita yang baru menerima kaitan dengan kenaikan NAC DA efflux.
BAHAN DAN KAEDAH
Subjek. Tikus Sprague Dawley jantan, yang diperoleh dari Pusat Penjagaan Haiwan (di Universiti British Columbia), dan tikus Long–Evans betina, yang diperoleh dari Charles River Canada (St. Constant, Quebec, Kanada), ditempatkan di dalam sangkar jaring dawai (18 × 25 × 65 cm; lima setiap sangkar) di bilik koloni yang berasingan. Bilik koloni dikekalkan pada suhu ~20°C pada kitaran terang/gelap 12 jam terbalik. Tikus mempunyai akses tanpa had kepada makanan (Purina Rat Chow) dan air.
Pembedahan dan ujian tingkah laku sebelum mikrodialisis otak. Tikus betina telah diovariektomi secara bilateral di bawah anestesia gas halothane (Fluothane, Ayerst Laboratories) sekurang-kurangnya 4 minggu sebelum ujian. Penerimaan seksual pada betina rangsangan telah diinduksi oleh suntikan subkutaneus estradiol benzoat (10 μg) dan progesteron (500 μg), masing-masing selama 48 dan 4 jam, sebelum setiap sesi ujian. Tikus jantan telah disaring untuk tingkah laku seksual sebanyak dua kali, dengan jarak 4 hari, di dalam ruang Plexiglas (35 × 35 × 40 cm) dengan lantai jaring dawai. Hanya tikus jantan yang mencapai kriteria prestasi, yang termasuk intromisi dalam masa 5 minit dari pembentangan betina dan ejakulasi dalam masa 15 minit dari intromisi pertama, semasa dua ujian saringan telah diimplan dengan kanula panduan prob mikrodialisis.
Tikus jantan ( n = 5) telah dibius dengan ketamin hidroklorida (100 mg/kg, ip) dan xylazine (10 mg/kg, ip) sebelum pembedahan stereotaksik. Kanula panduan prob mikrodialisis (tolok 19) telah diimplan secara bilateral di atas NAC (koordinat dari bregma: anterior, +1.7 mm; medial, ± 1.1 mm; ventral, −1.0 mm; tengkorak rata) dan telah diikat pada tengkorak dengan akrilik gigi dan skru tukang emas. Implan kanula panduan bilateral telah digunakan untuk memaksimumkan peluang untuk eksperimen mikrodialisis yang berjaya. Mujurlah, dalam eksperimen ini, hanya satu kanula diperlukan untuk setiap tikus. Tikus jantan ditempatkan secara individu dalam sangkar plastik besar dengan lapisan tongkol jagung untuk baki eksperimen. Seminggu selepas pembedahan, tikus telah diuji untuk tingkah laku seksual. Semasa bahagian latihan ini, ruang ujian dilengkapi dengan skrin Plexiglas gelongsor yang membahagikan ruang kepada petak besar dan kecil. Tikus jantan telah dimasukkan ke dalam petak besar dan 15 minit kemudian, seekor betina telah diletakkan di belakang skrin. Selepas tempoh persediaan selama 15 minit, skrin telah dikeluarkan dan tikus-tikus tersebut dibenarkan untuk melakukan hubungan seks selama 30 minit. Tiga sesi latihan telah dijalankan, satu setiap 4 hari. Semua tikus telah mencapai kriteria prestasi semasa setiap sesi.
Eksperimen kesan Coolidge. Tikus telah diimplan secara unilateral dengan prob mikrodialisis 12–18 jam sebelum eksperimen kesan Coolidge dan diletakkan di dalam petak besar ruang ujian dengan akses percuma kepada makanan dan air. Pada pagi eksperimen, sampel mikrodialisis dikumpulkan setiap 15 minit. Eksperimen ini terdiri daripada tujuh fasa berturut-turut berikut: (1) garis dasar (sekurang-kurangnya 60 minit); (2) betina 1 di belakang skrin (15 minit); (3) sanggama dengan betina 1 sehingga tempoh 30 minit berlalu tanpa tunggangan; (4) pengenalan semula betina 1 di belakang skrin (15 minit); (5) akses kepada betina 1 selama tempoh 15 minit dengan syarat tiada tunggangan (jika tunggangan berlaku, fasa ini dianggap sebagai fasa 3); (6) pengenalan betina 2 di belakang skrin (15 minit); 7) sanggama dengan betina 2 selama 60 minit.
Tingkah laku dirakam di bawah pencahayaan rendah menggunakan sistem video JVC dan diperhatikan pada monitor video yang terletak di luar bilik ujian. Ukuran standard tingkah laku seksual dirakam menggunakan komputer dan perisian yang sesuai ( Holmes et al., 1987 ).
Selepas eksperimen mikrodialisis, haiwan diberi overdosis hidrat chloral dan perfusi dengan intraselin dengan garam dan formalin (4%). Otak dihiris dan dibekukan, dan, kemudian, bahagian coronal diwarnai dengan cresyl violet untuk menentukan penempatan probe microdialysis. Hanya tikus dengan penempatan probe dalam NAC digunakan untuk analisis tingkah laku dan neurokimia.
Pengesanan mikrodialisis dan elektrokimia HPLC. Reka bentuk prob mikrodialisis adalah sepusat dengan membran gentian berongga separa telap (membran 2 mm terdedah, diameter luar 340 μm, potongan berat molekul 65000, Filtral 12, Hospal) pada hujung distal. Prob telah diperfusikan pada 1.0 μl/min dengan larutan Ringer yang diubah suai (penimbal natrium fosfat 0.01 m, pH 7.4, 1.3 mmCaCl2 , 3.0 mm KCl, 1.0 mmMgCl2 , 147 mm NaCl) menggunakan picagari kedap gas (Hamilton, Reno, NV) dan pam picagari (model 22, Harvard Apparatus, South Natick, MA). Kolar panduan prob mikrodialisis digunakan untuk memasang prob mikrodialisis di dalam kanula panduan. Satu gegelung keluli, yang dipasang pada pusaran cecair (Instech 375s) yang dipasang di atas ruang ujian, telah digunakan untuk melindungi tiub prob ( Fiorino et al., 1993 ).
Analit mikrodialisat, yang merangkumi DA dan metabolitnya asid dihiroksifenilasetat (DOPAC) dan asid homovanilik (HVA), telah diasingkan melalui kromatografi fasa terbalik (kolum Ultrasfera; Beckman, Fullerton, CA, ODS 5 μm, 15 cm, 4.6 mm, diameter dalam) menggunakan penimbal natrium asetat 0.083m, pH 3.5 (5% metanol). Kepekatan analit telah diukur melalui pengesanan elektrokimia (EC). Radas ini terdiri daripada pam Bio-Rad (Richmond, CA), penyuntik dua kedudukan Valco Instruments (Houston, TX) EC10W, pengesan ESA (Bedford, MA) Coulochem II EC, dan perakam carta dwi-saluran (Kipp dan Zonen, Bohemia, NY). Parameter pengesan elektrokimia adalah seperti berikut: elektrod 1, +450 mV; elektrod 2, −300 mV; dan sel pengawal, −450 mV. Pemulihan prob biasa, yang dijalankan secara in vitro dan pada suhu bilik, adalah 22% untuk DA, 18% untuk DOPAC, dan 18% untuk HVA.
KEPUTUSAN
Kelakuan
Ukuran tingkah laku daripada eksperimen kesan Coolidge dibentangkan dalam Jadual 1. Latensi untuk mount, intromit, dan ejakulasi, serta selang pasca-ejakulasi selepas ejakulasi pertama adalah serupa dengan sesi latihan sebelumnya (data tidak ditunjukkan). Ini menunjukkan bahawa prosedur mikrodialisis tidak mengubah tingkah laku seksual yang normal. Perkembangan kepuasan seksual, seperti yang ditunjukkan oleh purata bilangan ejakulasi sebelum kriteria dipenuhi (7.8 ± 0.5), penurunan progresif dalam bilangan intromisi sebelum setiap ejakulasi, dan peningkatan progresif dalam selang pasca-ejakulasi (data tidak ditunjukkan), adalah serupa dengan yang dilaporkan dalam kajian sebelumnya ( Beach dan Jordan, 1956 ; Fowler dan Whalen, 1961 ; Fisher, 1962 ; Bermant et al., 1966 ; Rodriguez-Manzo dan Fernandez-Guasti, 1994 ; Mas et al., 1995d ). Kebolehubahan individu diperhatikan berkenaan dengan bilangan ejakulasi yang dicapai dengan betina 1, masa yang dihabiskan untuk bersetubuh dengan betina 1, dan bilangan persembahan betina 1 yang diperlukan untuk mencapai kriteria kepuasan (Jadual 1 , bawah). Sesetengah tikus memerlukan banyak pengenalan semula betina 1 sehingga fasa 5 selesai ( n = 3). Tindakan meletakkan betina 1 di belakang skrin dan penyingkiran sekatan mungkin berfungsi sebagai isyarat selera utama yang membawa kepada persetubuhan. Perlu juga diperhatikan bahawa kriteria kepuasan selama 30 minit tanpa tunggangan, walaupun telah digunakan sebelum ini (Beach dan Jordan, 1965; Mas et al., 1995b ), adalah sewenang-wenangnya dan tidak menjamin bahawa tikus tidak akan menunggang jika diberi lebih banyak masa. Walaupun begitu, kelewatan atau prosedur penyingkiran dan penggantian tidak menghasilkan persetubuhan baharu dengan andal dengan betina 1 (contohnya, fasa 4 dan 5).
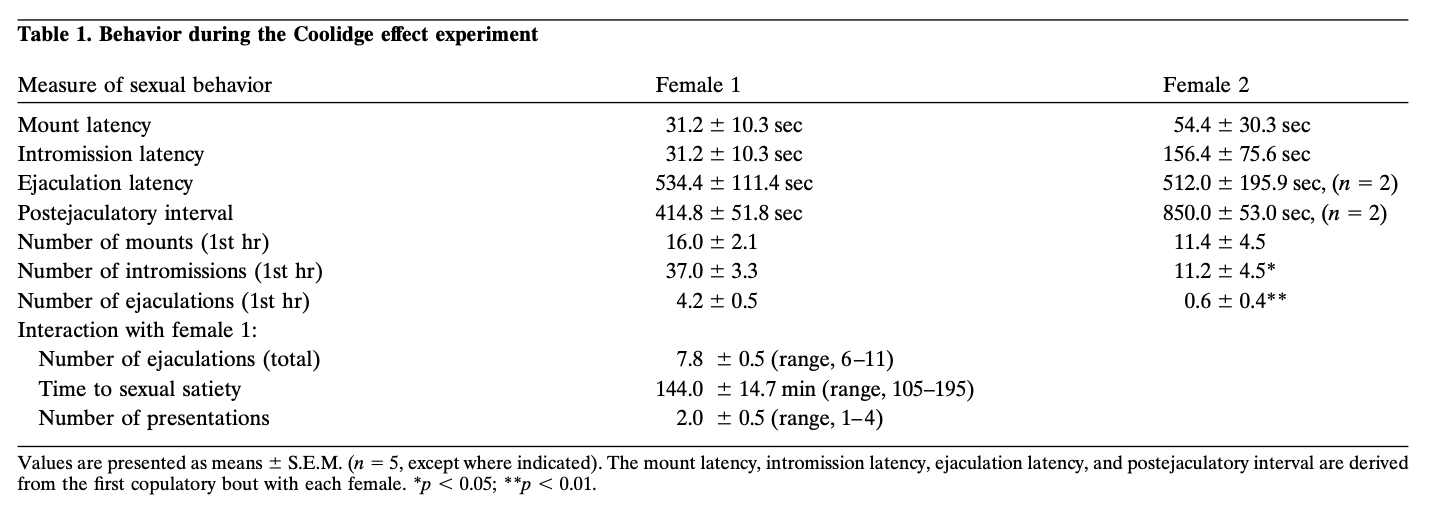
Kelakuan semasa eksperimen kesan Coolidge
Semua tikus menunjukkan kesan Coolidge. Aktiviti yang berkaitan dengan penempatan betina 2 di belakang skrin dan, khususnya, penyingkiran partition mungkin telah menyumbang kepada keputusan ini, tetapi, sekali lagi, peristiwa ini sendiri tidak mencukupi untuk memperbaharui kopulasi lebih awal dalam eksperimen. Perbandingan antara ukuran tingkah laku seksual dengan betina 1 dan betina 2 dibuat menggunakan ujian- t dengan pembetulan Bonferroni. Walaupun latensi tunggangan dan intromisi sebagai tindak balas kepada betina 2 tidak berbeza dengan ketara daripada yang berlaku dalam pertarungan kopulasi pertama dengan betina 1, secara amnya, tingkah laku seksual dengan betina 2 kurang mantap, seperti yang ditunjukkan oleh ejakulasi yang jauh lebih sedikit (min, 0.6 vs 4.2; F = 49.86; p < 0.01) dan intromisi (min = 11.2 vs 37.0; F = 20.17; p < 0.05) semasa jam pertama. Bilangan tunggangan pada jam pertama dengan betina 1 dan 2 tidak berbeza dengan ketara.
Adalah penting untuk diperhatikan bahawa wanita yang digunakan semasa bahagian percubaan eksperimen (iaitu, wanita 1) masih mempamerkan tingkah laku yang kronik (iaitu, melompat dan melenggang) yang kuat dan tingkah laku (iaitu, lordosis) yang kuat untuk tempoh lengkap hubungan mereka dengan lelaki .
Neurokimia
Kepekatan nanomolar basal DA dan metabolitnya dalam mikrodialisat, yang ditunjukkan sebagai min ± SEM, bagi tiga sampel asas pertama ialah: DA, 3.0 ± 0.7; DOPAC, 619.1 ± 77.7; dan HVA, 234.2 ± 49.0 (tidak dibetulkan untuk pemulihan prob; n = 5). Nilai-nilai ini mewakili skor asas 100%.
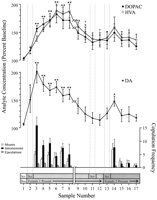
Titik data yang ditakrifkan secara tingkah laku, sepadan dengan setiap fasa eksperimen dan lazim bagi setiap tikus, telah digunakan untuk analisis neurokimia. Ini termasuk yang berikut: (1) tujuh sampel selepas pengenalan pertama betina 1, (2) empat sampel yang mengiringi ketiadaan tingkah laku kopulasi dengan betina 1, dan (3) lima sampel selepas pembentangan betina 2. Rajah 1 menggambarkan perubahan dalam kepekatan DA (graf garis, tengah ) dan metabolit DA (graf garis, atas ) selari dengan tingkah laku kopulasi (graf bar, bawah ) semasa ujian untuk kesan Coolidge.
Lihat versi yang lebih besar:
Rajah. 1.
Nukleus mengakumulasi korelasi neurokimia tingkah laku seksual semasa kesan Coolidge. Lapan sampel pertama mewakili titik data berterusan secara kronologi dari fasa 1 hingga 3. Sampel 1 ialah sampel asas prakopulasi keempat dan terakhir ( Bas ). Sampel 2 mewakili pengenalan betina 1 di belakang skrin ( Scr ). Selepas 15 minit, skrin dikeluarkan, dan tikus dibenarkan untuk melakukan kopulasi (sampel 3–8). Putus pada paksi -x sepadan dengan pengecualian data daripada tiga tikus yang melakukan kopulasi untuk tempoh yang lama dengan betina awal. Sembilan sampel terakhir juga berterusan secara kronologi. Sampel 9 dan 10 sepadan dengan tempoh kenyang fasa 3 (iaitu, 30 minit tanpa tunggangan). Betina 1 kemudian dimasukkan semula di belakang skrin (sampel 11) dan, 15 minit kemudian, skrin dikeluarkan (sampel 12). Selepas 15 minit tanpa kopulasi, betina 2 diletakkan di belakang skrin (sampel 13). Sampel 14–17 sepadan dengan kopulasi dengan betina 2. Bilangan tunggangan, intromisi atau ejakulasi yang berkaitan dengan setiap sampel mikrodialisis 15 minit ditunjukkan dalam graf bar bawah . Data neurokimia dinyatakan dalam peratusan kepekatan garis dasar. Perubahan dalam efluks NAC DA ( petak tertutup ), DOPAC ( bulatan tertutup ), dan HVA ( bulatan terbuka ) dibentangkan sebagai graf garis . Perbandingan berikut telah dibuat: sampel garis dasar 1 berbanding sampel 2–10; sampel garis dasar baharu 10 berbanding sampel 11 dan 12; sampel garis dasar baharu 12 berbanding sampel 13–17 (* p < 0.05; ** p < 0.01). Ujian t bebas telah dibuat antara nilai garis dasar (sampel 1, 10 dan 12). Untuk perbezaan yang ketara daripada garis dasar pertama (sampel 1), † p < 0.05.
ANOVA sehala, ukuran berulang yang berasingan telah dijalankan ke atas data neurokimia yang dikaitkan dengan wanita 1 (sampel 1–12) dan wanita 2 (sampel 12–17). Perbandingan a priori telah dibuat menggunakan ujian perbandingan berganda Dunn (Bonferroni t ). Tiga perbandingan utama berikut telah dibuat: (1) garis dasar awal (sampel 1) berbanding sampel 2–10 (pendedahan pertama kepada wanita 1), (2) garis dasar kedua (sampel 10) berbanding sampel 11 dan 12 (pendedahan semula kepada wanita 1), dan (3) garis dasar ketiga (sampel 12) berbanding sampel 13–17 (pendedahan kepada wanita 2).
Terdapat perubahan keseluruhan yang ketara dalam pengaliran keluar DA sebagai tindak balas kepada betina 1 [ F (11,44) = 8.48; p < 0.001] dan betina 2 [ F (5,20) = 2.83; p < 0.05]. Peningkatan ketara dalam pengaliran keluar DA didapati apabila betina 1 hadir di belakang skrin (+44%, p < 0.05; sampel 2). Semasa kopulasi, kepekatan DA meningkat lagi, mencapai nilai maksimum (+95%; p < 0.01) semasa pertarungan kopulasi pertama (sampel 3). DA kekal tinggi sepanjang kopulasi dan hanya kembali kepada kepekatan asas dalam tempoh 30 minit di mana tiada pelekap berlaku (sampel 9 dan 10). Pengenalan semula betina 1 di belakang skrin (sampel 11) mahupun peluang untuk berinteraksi secara fizikal, tetapi tanpa pelekap (sampel 12), kepekatan DA meningkat berbanding nilai asas kedua (sampel 10). Kehadiran betina 2 di belakang skrin (sampel 13) mengakibatkan peningkatan kecil dalam efluks DA (12%) daripada nilai garis dasar ketiga (sampel 12) yang tidak mencapai kepentingan statistik. Persetubuhan semula dengan betina 2 mengakibatkan peningkatan ketara (34%) dalam efluks DA semasa sampel persetubuhan pertama (sampel 14). Walaupun tingkah laku persetubuhan yang lemah berterusan sepanjang tiga sampel seterusnya, kepekatan DA menurun kepada nilai garis dasar (sampel 15–17). Ujian t bebas yang dijalankan antara sampel "garis dasar" (iaitu, 1, 10, dan 12) menunjukkan bahawa nilai-nilai ini tidak berbeza secara signifikan.
Dalam ketiga-tiga tikus yang menyambung semula perkongsian apabila 1 wanita diperkenalkan semula, konsentrasi NAC DA meningkat apabila 1 wanita berada di belakang skrin (julat, 25-47%) dan semasa copulasi (julat, 13-37%), berbanding sampel sahaja sebelum pengenalan semula wanita. Walau bagaimanapun, kenaikan ini hanya berlaku apabila tingkah laku seksual bertambah kuat dan menyebabkan ejakulasi.
Perubahan keseluruhan yang ketara dalam kepekatan DOPAC [ F (11,44) = 9.57; p < 0.001] dan HVA [ F (11,44) = 12.47; p < 0.001] didapati sebagai tindak balas kepada betina 1, tetapi bukan betina 2. Kepekatan metabolit meningkat sedikit (+15% dalam kedua-dua kes) semasa pembentangan betina 1 di belakang skrin (sampel 2), tetapi ini tidak signifikan secara statistik. Walau bagaimanapun, terdapat peningkatan ketara dalam kepekatan DOPAC dan HVA semasa sanggama (sampel 3–8), mencapai nilai maksimum (masing-masing +80 dan +86%; p < 001) selepas 60 minit (sampel 6 dalam kedua-dua kes). Walaupun kepekatan metabolit menurun semasa tempoh ketidakaktifan seksual pada akhir sentuhan dengan betina 1 (sampel 9 dan 10), kepekatan masih kekal tinggi berbanding garis dasar ( p < 0.05 dalam kedua-dua kes). Pengenalan semula betina 1 di belakang skrin (sampel 11), akses kepada betina 1 selepas penyingkiran skrin (sampel 12), dan pengenalan betina 2 (sampel 13) tidak menyebabkan sebarang perubahan dalam kepekatan metabolit. Peningkatan yang sedikit, tetapi tidak signifikan secara statistik, dalam kepekatan DOPAC dan HVA (+23% dalam kedua-dua kes) berbanding dengan garis dasar (sampel 12) sepadan dengan serangan pertama sanggama dengan betina 2 (sampel 14). Walau bagaimanapun, peningkatan ini tidak bertahan lama dan menurun kepada nilai garis dasar untuk tiga sampel yang tinggal (15–17). Ujian t bebas yang dijalankan antara sampel "garis dasar" (iaitu, 1, 10, dan 12) menunjukkan bahawa nilai garis dasar kedua dan ketiga (masing-masing sampel 10 dan 12), walaupun tidak berbeza antara satu sama lain, kekal tinggi dengan ketara berbanding sampel garis dasar pertama untuk DOPAC dan HVA ( p < 0.05 dalam kedua-dua kes).
Histologi
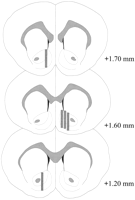
Prob mikrodialisis terletak di NAC (Rajah 2 ) dalam julat yang menjangkau +1.20 hingga +1.70 mm dari bregma (tengkorak rata). Terdapat juga kepelbagaian dalam satah mediolateral; data mencerminkan persampelan daripada subkawasan cangkerang dan teras NAC.
Lihat versi yang lebih besar:
Rajah. 2.
Lokasi prob mikrodialisis dalam NAC tikus jantan yang digunakan dalam eksperimen kesan Coolidge. Segi empat tepat yang berlorek sepadan dengan kawasan membran prob mikrodialisis yang terdedah. Keratan koronal otak bersiri telah dilukis semula daripada Paxinos dan Watson (1986).
PERBINCANGAN
Selaras dengan laporan terdahulu, keputusan semasa menunjukkan peningkatan transmisi DA mesolimbik yang dikaitkan dengan komponen selera makan dan penyempurnaan tingkah laku seksual tikus jantan seperti yang dinilai oleh mikrodialisis in vivo ( Mas et al., 1990 ; Pfaus et al., 1990 ; Pleim et al., 1990 ; Damsma et al., 1992 ; Wenkstern et al., 1993 ; Fumero et al., 1994 ; Mas et al., 1995a , b , d ). Di samping itu, keputusan ini memberikan korelasi neurokimia untuk kepuasan seksual dan permulaan semula sanggama seterusnya sebagai tindak balas kepada betina reseptif baharu (kesan Coolidge). Data semasa menunjukkan bahawa sifat rangsangan betina reseptif baharu boleh berfungsi untuk meningkatkan transmisi NAC DA pada tikus jantan yang kenyang secara seksual yang mungkin, seterusnya, berkaitan dengan permulaan semula tingkah laku seksual. Ini pertama kali terbukti dalam sedikit peningkatan NAC DA semasa pembentangan wanita baru di belakang skrin dan berlaku paling meyakinkan sebagai peningkatan yang lebih ketara semasa kopulasi baharu dengan wanita 2 (Rajah 1 ).
Kehadiran betina reseptif pertama di belakang skrin mengakibatkan peningkatan selera makan yang kuat dalam efluks NAC DA (44% dari garis dasar) yang sama magnitudnya dengan apa yang dilaporkan dalam eksperimen sebelumnya menggunakan reka bentuk yang serupa (30%, Pfaus et al., 1990 ; 35%, Damsma et al., 1992 ). Turut bersetuju dengan kajian ini ialah pemerhatian bahawa efluks NAC DA dipertingkatkan lagi semasa sanggama (kepada >95% di atas garis dasar dalam eksperimen ini). Walaupun kita boleh melihat tingkah laku konsumtif sebagai dikaitkan dengan peningkatan pembebasan NAC DA ( Wenkstern et al., 1993 ; Wilson et al., 1995 ), adalah penting untuk mengkaji istilah "selera makan" dan "konsumtif" dalam konteks tingkah laku seksual. Manakala fasa di mana betina hadir di belakang skrin adalah semata-mata selera makan atau persediaan, tingkah laku semasa fasa sanggama tidak boleh dianggap semata-mata konsumtif. Oleh kerana "selera" boleh digunakan untuk menggambarkan semua tingkah laku yang membawa kepada penyempurnaan tingkah laku yang bermotivasi (kopulasi), tingkah laku utama yang ditunjukkan oleh lelaki semasa aktif dalam fasa "konsumtif" paling baik digambarkan sebagai selera; lelaki menghabiskan sebahagian besar masa dan usahanya mengejar betina untuk melakukan hubungan seks. Dalam hal ini, kita boleh mengaitkan penghantaran NAC DA maksimum dengan komponen selera yang konsumtif serta sengit bagi tingkah laku seksual tikus jantan.
Akses kepada betina baharu kedua mengakibatkan kopulasi baharu dalam setiap subjek. Kajian terdahulu telah menunjukkan bahawa kebanyakan tikus yang dibenarkan bersanggama sehingga kenyang, menggunakan protokol tingkah laku yang serupa dengan yang digunakan dalam eksperimen ini, tidak menyambung semula mengawan apabila diuji 24 jam kemudian ( Beach dan Jordan, 1956 ). Kemungkinan besar kehadiran sifat rangsangan baharu betina 2, yang mungkin termasuk isyarat olfaktori serta visual dan auditori, mengakibatkan kopulasi baharu. Satu soalan yang menarik, yang masih belum dijawab, ialah melalui mekanisme apakah tikus jantan membezakan betina baharu daripada betina yang telah dikawinkannya baru-baru ini. Tapak untuk mekanisme itu mungkin terletak pada sistem olfaktori utama. Telah dilaporkan bahawa integriti sistem ini adalah penting untuk kesan Coolidge dalam hamster ( Johnston dan Rasmussen, 1984 ). Walau bagaimanapun, sistem olfaktori vomeronasal-aksesori, di mana proses ingatan feromon telah diterangkan baru-baru ini pada tikus ( Kaba et al., 1994 ), juga merupakan calon utama. Dalam hal ini, perlu diperhatikan bahawa peningkatan dalam penghantaran NAC DA diukur menggunakan voltametri in vivo pada tikus jantan yang diberikan alas tidur yang didedahkan kepada tikus betina dalam estrus ( Louillot et al., 1991 ; Mitchell dan Gratton, 1992 ). Tambahan pula, penggunaan K + secara langsung pada lapisan saraf vomeronasal pada mentol olfaktori aksesori, serta pada mentol olfaktori aksesori itu sendiri, mencukupi untuk meningkatkan penghantaran NAC DA ( Mitchell dan Gratton, 1992 ).
Pertembungan min 15 yang pertama dengan wanita 2 dikaitkan dengan kenaikan ketara dalam NAC DA. Berbeza dengan 1 perempuan, interaksi dengan wanita 2 tidak menghasilkan kenaikan NAC DA pada magnitud yang sama semasa fasa (12%) atau fungsinya (34%). Ini peningkatan kecil dalam NAC DA, bagaimanapun, berkorelasi baik dengan tahap pengurangan tingkah laku seksual yang dipaparkan dengan 2 perempuan dibandingkan dengan wanita 1. Kepekatan metabolit kekal tinggi semasa fasa kenyang, menghasilkan kepekatan baseline baru (sampel 10 dan 12) yang dinaikkan dengan ketara dari nilai asas awal (contoh 1).
Kelewatan temporal dalam peningkatan kepekatan DOPAC dan HVA semasa kopulasi adalah konsisten dengan pembentukannya sebagai metabolit sebatian induk, DA. Telah dicadangkan bahawa kepekatan metabolit mikrodialisis, sekurang-kurangnya semasa tingkah laku semula jadi yang tidak didorong secara farmakologi, memberikan indeks aktiviti saraf yang berguna ( Damsma et al., 1992 ; Fumero et al., 1994 ). Hakikat bahawa kepekatan metabolit kekal tinggi walaupun semasa tempoh ketidakaktifan seksual dalam eksperimen ini, apabila kepekatan DA telah kembali kepada nilai asas praujian, menimbulkan keraguan terhadap cadangan ini.
Ketinggian kepekatan metabolit DA yang dilihat dalam eksperimen ini mencerminkan medan preoptic area (mPOA) profil metabolit DA yang diperhatikan pada tikus pada hari pertama setelah mereka berpisah dengan pemakanan (Mas et al., 1995a,b). Ketinggian konsentrasi DOPAC dan HVA yang berterusan di NAC atau mPOA tidak selalu dipatuhi apabila tempoh mengawan itu adalah tempoh tetap, jauh lebih pendek daripada masa yang diperlukan untuk mencapai tahap. Sebagai contoh, banyak kajian telah menunjukkan bahawa kepekatan DOPAC meningkat dan kekal tinggi semasa persamaan tetapi menolak kepada nilai-nilai asas tidak lama selepas wanita itu dikeluarkan (Pfaus et al., 1990; Pleim et al., 1990; Damsma et al., 1992;Hull et al., 1993; Wenkstern et al., 1993; Hull et al., 1995). Dalam kajian oleh Mas et al. (1995b), kepekatan extracellular basal DOPAC dan HVA dalam mPOA kekal dinaikkan pada hari-hari berturut-turut 4 yang bersamaan dengan tempoh ketidakaktifan seksual. Pada hari keempat, sebelum haiwan kembali menyambung, kepekatan metabolit dasar adalah dekat dengan nilai presatiasi. Penulis menyamakan corak perubahan neurokimia kepada mereka yang dilihat selepas pentadbiran penghalang reseptor DA (Zetterström et al., 1984; Imperato dan DiChiara, 1985) dan telah mencadangkan bahawa keadaan ketidakaktifan seksual boleh diantarkan melalui pembebasan prolaktin, yang boleh bertindak sebagai "neuroleptik endogen" (Mas et al., 1995a,b,d). Adalah jelas bahawa pentadbiran neuroleptik disertai dengan peningkatan kepekatan metabolit ekstraselular dan DA efflux (Zetterström et al., 1984; Imperato dan DiChiara, 1985). Malangnya, Mas et al. (1995a,b) tidak dapat mengesan kepekatan mPOA DA. Dalam kajian ini, kepekatan DA di NAC kembali kepada nilai awal, sedangkan kepekatan DOPAC dan HVA kekal tinggi. Corak ini tidak konsisten dengan peranan untuk bertindak neuroleptik endogen di NAC untuk mendorong ketegangan seksual.
Memandangkan penglibatan neuron DA mesolimbik dalam tingkah laku bermotivasi ( Fibiger dan Phillips, 1986 ; Blackburn et al., 1992 ; Kalivas et al., 1993 ; LeMoal, 1995 ) dan kepekaannya terhadap rangsangan persekitaran baharu ( Fabre et al., 1983 ; Schultz, 1992 ; Mirenowicz dan Schultz, 1994 ), peningkatan kepekatan ekstraselular NAC DA yang diperhatikan sebagai tindak balas kepada wanita baharu adalah selaras dengan hipotesis bahawa aktiviti dalam sistem DA ini adalah penting untuk memulakan semula tingkah laku seksual. Di samping itu, laporan peningkatan selera makan dan pengkonsumtif dalam penghantaran DA ( Hull et al., 1993 , 1995 ; Mas et al., 1995b ; Sato et al., 1995 ) dan aktiviti neuron ( Shimura et al., 1994 ) dalam mPOA tikus jantan semasa tingkah laku seksual menunjukkan bahawa struktur ini juga boleh menyumbang kepada ciri kopulasi baharu bagi kesan Coolidge.
Selaras dengan peranan umum untuk sistem DA mesolimbik dalam tingkah laku bermotivasi, telah diketahui umum bahawa kepekatan DA ekstraselular juga meningkat sebelum, semasa, dan sejurus selepas pengambilan makanan, dengan kembali kepada nilai asas ~30 minit kemudian ( Wilson et al., 1995 ). Telah diketahui umum bahawa rasa kenyang yang disebabkan oleh makanan dipengaruhi oleh sifat derianya. Manusia dan haiwan menolak makanan yang mereka makan sehingga kenyang dan menelan makanan lain yang belum dimakan ( Rolls, 1986 ). Ini menimbulkan persoalan sama ada efluks DA ekstraselular dalam NAC akan ditingkatkan secara selektif dengan penyampaian sejenis makanan baharu, tetapi bukan oleh makanan yang dimakan baru-baru ini sehingga kenyang dengan cara yang serupa dengan yang dilaporkan dalam kajian ini dalam konteks motivasi seksual. Jika disahkan, hubungan umum antara sifat deria ganjaran semula jadi, rasa kenyang, dan penghantaran DA mesolimbik ini akan membayangkan peranan penting untuk sistem saraf ini dalam pengawalaturan proses motivasi, gangguan yang boleh menyebabkan gangguan makan dan fungsi seksual yang serius.
RUJUKAN
- ↵
- Pantai FA,
- Jordan L
(1956) Keletihan dan pemulihan seksual pada tikus lelaki. QJ Exp Psychol 8: 121-133.
- ↵
- Bermant G,
- Lott DF,
- Anderson L
(1966) Ciri-ciri temporal kesan Coolidge dalam tingkah laku perilaku tikus lelaki. J Comp Physiol Psikiatri 65: 447-452.
- ↵
- Blackburn JR,
- Pfaus JG,
- Phillips AG
(1992) Fungsi dopamine dalam tingkah laku selera dan pertahanan. Prog Neurobiol 39: 247-279.
- ↵
- Damsma G,
- Pfaus JG,
- Wenkstern D,
- Phillips AG,
- Fibiger HC
(1992) Tingkah laku seksual meningkatkan penghantaran dopamin dalam nukleus accumbens dan striatum tikus lelaki: perbandingan dengan kebaruan dan lokomosi. Behav Neurosci 106: 181-191.
- ↵
- Fabre M,
- Rolls ET,
- Ashton JP,
- Williams G
(1983) Kegiatan neuron di wilayah tegegal ventral monyet berkelakuan. Behav Brain Res 9: 213-235.
- ↵
- Fibiger HC,
- Phillips AG
(1986) Ganjaran, motivasi, kognisi: psikobiologi sistem dopamine mesotelencephalic. dalam Buku Panduan fisiologi: sistem saraf IV, edisi Bloom FE, Geiger SD (American Physiology Society, Bethesda, MD), pp 647-675.
- ↵
- Fiorino DF,
- Coury AG,
- Fibiger HC,
- Phillips AG
(1993) Rangsangan elektrik bagi laman-laman ganjaran di kawasan tegegalal ventral meningkatkan penghantaran dopamin dalam nukleus accumbens tikus. Behav Brain Res 55: 131-141.
- ↵
- Fisher A
(1962) Kesan variasi rangsangan terhadap pemakanan seksual di tikus lelaki. J Comp Physiol Psikiatri 55: 614-620.
- ↵
- Fowler H,
- Whalen RE
(1961) Variasi dalam rangsangan insentif dan tingkah laku seksual di tikus lelaki. J Comp Physiol Psikiatri 54: 68-71.
- ↵
- Fumero B,
- Fernendez-Vera JR,
- Gonzalez-Mora JL,
- Mas M
(1994) Perubahan dalam perolehan monoamine di kawasan forebrain yang dikaitkan dengan tingkah laku seksual lelaki: kajian microdialysis. Otak Res 662: 233-239.
- ↵
- Holmes GM,
- Holmes DG,
- Sachs BD
(1987) Sistem pungutan data berasaskan IBM-PC untuk merakam tingkah laku seksual tikus dan untuk rakaman acara umum. Physiol Behav 44: 825-828.
- ↵
- Hull EM,
- Eaton RC,
- Musa J,
- Lorrain DS
(1993) Penipuan meningkatkan aktiviti dopamin di kawasan preoptic medial tikus lelaki. Sains hidup 52: 935-940.
- ↵
- Hull EM,
- Jianfang D,
- Lorrain DS,
- Matuszewich L
(1995) Dopamine ekstraselular dalam medan preoptik medial: implikasi untuk motivasi seksual dan kawalan hormon terhadap perkongsian. J Neurosci 15: 7465-7471.
- ↵
- Imperato A,
- DiChiara G
(1985) Pembebasan dan metabolisme dopamine dalam tikus berjaga-jaga selepas neuroleptik sistemik seperti yang dikaji oleh dialisis trans-striatal. J Neurosci 5: 297-306.
- ↵
- Johnston RE,
- Rasmussen K
(1984) Pengiktirafan individu hamster wanita oleh lelaki: peranan isyarat kimia dan sistem penciuman dan vomeronasal. Physiol Behav 33: 95-104.
- ↵
- Kaba H,
- Hayashi Y,
- Higuchi T,
- Nakanishi S
(1994) Memindah ingatan penciuman dengan pengaktifan reseptor glutamat metabotropik. Sains 265: 262-264.
- ↵
- Kalivas PW,
- Sorg BA,
- Hooks MS
(1993) Farmakologi dan litar saraf pemekaan kepada psikostimulus. Behav Pharmacol 4: 315-334.
- ↵
- LeMoal M
(1995) Mesoporticolimbic neuron dopaminergik. Peranan fungsian dan peraturan. dalam Psychopharmacology: generasi keempat kemajuan, ed edisi Bloom FE, Kupfer DJ (Raven, New York), pp 283-294.
- ↵
- Louillot A,
- Gonzalez-Mora JL,
- Guadalupe T,
- Mas M
(1991) Rangsangan penenang yang berhubungan dengan seks menyebabkan peningkatan selektif dalam pembebasan dopamin dalam nukleus akut tikus lelaki. Otak Res 553: 313-317.
- ↵
- Mas M,
- Gonzalez-Mora JL,
- Louillot A,
- Sole C,
- Guadalupe T
(1990) Peningkatan pembebasan dopamine dalam nukleus akumulasi penyebaran tikus jantan seperti yang terbukti dalam vivo voltammetry. Neurosci Lett 110: 303-308.
- ↵
- Mas M,
- Fumero B,
- Fernandez-Vera JR,
- Gonzalez-Mora JL
(1995a) Kaitan neurokimia keletihan seksual dan pemulihan seperti yang dinilai oleh mikrodialisis vivo. Otak Res 675: 13-19.
- ↵
- Mas M,
- Fumero B,
- Gonzalez-Mora JL
(1995b) Pemantauan voltammetrik dan microdialysis mengenai pembebasan neurotransmitter monoamine otak semasa interaksi sosioseksual. Behav Brain Res 71: 69-79.
- ↵
- Mas M,
- Fumero B,
- Perez-Rodriguez I
(1995c) Induksi perilaku mengawan oleh apomorphine dalam tikus yang bersenggama secara seksual. Eur J Pharmacol 280: 331-334.
- ↵
- Mas M,
- Fumero B,
- Perez-Rodriguez I,
- Gonzalez-Mora JL
(1995d) Neurokimia kegemukan seksual. Model eksperimen yang menghalang keinginan. dalam Farmakologi fungsi seksual dan disfungsi, ed Bancroft J (Raven, New York), pp 115-126.
- ↵
- Mirenowicz J,
- Schultz W
(1994) Kepentingan ketidakpastian untuk membalas ganjaran dalam neuron dopaminergik primate. J Neurophysiol 72: 1024-1027.
- ↵
- Mitchell JB,
- Gratton A
(1992) Pelepasan dopamin Mesolimbic yang ditimbulkan oleh pengaktifan sistem pengawal aksesori: satu kajian chronoamperometrik berkelajuan tinggi. Neurosci Lett 140: 81-84.
- ↵
- Paxinos G,
- Watson C
(1986) Otak tikus dalam koordinat stereotaxic (2nd ed). (Akademik, San Diego).
- ↵
- Pfaus JG,
- Damsma G,
- Nomikos GG,
- Wenkstern D,
- Blaha CD,
- Phillips AG,
- Fibiger HC
(1990) Tingkah laku seksual meningkatkan penghantaran dopamin pusat di tikus lelaki. Otak Res 530: 345-348.
- ↵
- Pfaus JG,
- Everitt BJ
(1995) Psikofarmakologi tingkah laku seksual. dalam Psychopharmacology: generasi keempat kemajuan, ed edisi Bloom FE, Kupfer DJ (Raven, New York), pp 743-758.
- ↵
- Pfaus JG,
- Gorzalka BB
(1987) Opioid dan tingkah laku seksual. Neurosci Biobehav Rev 11: 1-34.
- ↵
- Phillips AG,
- Blaha CD,
- Pfaus JG,
- Blackburn JR
(1992) Hubungan neurobiologi keadaan emosi positif: dopamin, jangkaan dan ganjaran. dalam kajian semula Antarabangsa tentang emosi, ed Strongman (Wiley, New York), pp 31-50.
- ↵
- Pleim ET,
- Matochik JA,
- Barfield RJ,
- Auerbach SB
(1990) Korelasi pelepasan dopamin dalam nukleus akrab dengan tingkah laku seksual maskulin dalam tikus. Otak Res 524: 160-163.
- ↵
- Rodriguez-Manzo G,
- Fernandez-Guasti A
(1994) Pembalikan keletihan seksual oleh ejen serotonergik dan noradrenergik. Behav Brain Res 62: 127-134.
- ↵
- Rodriguez-Manzo G,
- Fernandez-Guasti A
(1995a) Penyertaan sistem noradrenergik pusat dalam reestablishment tingkah laku copulatori tikus yang haus seksual oleh yohimbine, naloxone, dan 8-OH-DPAT. Bruce Res Bull 38: 399-404.
- ↵
- Rodriguez-Manzo G,
- Fernandez-Guasti A
(1995b) Antagonis opioid dan fenomena pemadaman seksual. Psychopharmacol 122: 131-136.
- ↵
- Rolls BJ
(1986) Ketegangan khusus sensori. Nutr Rev 44: 93-101.
- ↵
- Salamone JD
(1996) Neurokimia perilaku motivasi: isu metodologi dan konseptual dalam kajian aktiviti dinamik nukleus akui dopamin. Kaedah Neurosci 64: 137-149.
- ↵
- Sato Y,
- Wada H,
- Horita H,
- Suzuki N,
- Shibuya A,
- Adachi H,
- Kato R,
- Tsukamoto T,
- Kumamoto Y
(1995) Pembebasan dopamine di kawasan preoptik medial semasa tingkah laku penopang lelaki pada tikus. Otak Res 692: 66-70.
- ↵
- Schultz W
(1992) Aktiviti neuron dopamine dalam primata berkelakuan. Semin Neurosci 4: 129-138.
- ↵
- Shimura T,
- Yamamoto T,
- Shimokochi M
(1994) Kawasan preoptik medial terlibat dalam kedua-dua gairah seksual dan prestasi dalam tikus lelaki: penilaian semula aktiviti neuron dalam haiwan bergerak bebas. Otak Res 640: 215-222.
- ↵
- Wenkstern D,
- Pfaus JG,
- Fibiger HC
(1993) Peningkatan penghantaran dopamine dalam nukleus akut tikus lelaki semasa pendedahan pertama mereka terhadap tikus betina yang berisiko seksual. Otak Res 618: 41-46.
- ↵
- Wilson C,
- Nomikos GG,
- Collu M,
- Fibiger HC
(1995) Hubungan dopaminergik terhadap tingkah laku motivasi: pentingnya memandu. J Neurosci 15: 5169-5178.
- ↵
- Wilson JR,
- Kahn RE,
- Pantai FA
(1963) Pengubahsuaian dalam tingkah laku seksual tikus lelaki yang dihasilkan dengan menukar wanita rangsangan. J Comp Physiol Psikiatri 56: 636-644.
- ↵
- Zetterström T,
- Sharp T,
- Ungerstedt U
(1984) Kesan ubat neuroleptik pada pembebasan dopamine dan metabolisme striatal dalam tikus terjaga yang dikaji oleh dialisis intracerebral. Eur J Pharmacol 106: 27-37.
Artikel yang memetik artikel ini
-
Neuroplasticity yang disebabkan oleh Opioid endogenous Neuron Dopaminergik di Kawasan Tegmental Ventral Pengaruh Ganjaran Alam dan Opiate Jurnal Neurosains, 25 Jun 2014, 34 (26): 8825-8836
-
Ketidakseimbangan dalam kepekaan terhadap pelbagai jenis ganjaran dalam perjudian patologi Otak, 1 Ogos 2013, 136 (8): 2527-2538
-
Akta Ganjaran Semulajadi dan Ubat Mengenai Mekanisme Plastik Neural Bersama dengan {Delta} FosB sebagai Pengantara Utama Jurnal Neurosains, 20 Februari 2013, 33 (8): 3434-3442
-
Tindak balas Neuronal dalam Nucleus Accumbens Shell semasa Kelakuan Seksual dalam Tikus Lelaki Jurnal Neurosains, 1 Februari 2012, 32 (5): 1672-1686
-
Cinta romantis: sistem otak mamalia untuk pilihan pasangan Transaksi filosofi Royal Society B: Sains Biologi, 29 Disember 2006, 361 (1476): 2173-2186
-
Hedonic Hot Spots dalam Otak Ahli sains Neuroses, 1 Disember 2006, 12 (6): 500-511
-
Modulasi oleh Central and Basolateral Amygdalar Nuclei Dopaminergic Correlates of Feeding to Satiety dalam Tikus Nucleus Accumbens and Medial Prefrontal Cortex Jurnal Neurosains, 15 Disember 2002, 22 (24): 10958-10965
-
Kekerapan Transfusi Kepekatan Dopamine Meningkatkan Strok Pinggang Punggung dan Ventral Tikus Muda semasa Pengenalan Kepentingan Jurnal Neurosains, 1 Disember 2002, 22 (23): 10477-10486
-
Kajian Buku: Dinamik Dopamine Ekstraselular dalam Tindakan Akut dan Kronik Cocaine Ahli sains Neuroses, 1 Ogos 2002, 8 (4): 315-322
-
Penglibatan Berbeza NMDA, AMPA / Kainate, dan Dopamin Receptors di Inti Nukleus Accumbens dalam Perolehan dan Pencapaian Kelakuan Pendekatan Pavlovian Jurnal Neurosains, 1 Disember 2001, 21 (23): 9471-9477
-
Kawalan tingkah laku kokain yang dicari oleh rangsangan ubat-ubatan yang berkaitan dengan tikus: Kesan pemulihan paras-paras dopamin yang bertindak balas dan bertindak balas pada amigdala dan nukleus accumbens PNAS, 11 April 2000, 97 (8): 4321-4326
-
Fasilitasi Perilaku Seksual dan Enhanced Dopamine Efflux di Nukleus Accumbens Tikus Laki-laki setelah Sensitisasi Perilaku D-Amphetamine-Induced Jurnal Neurosains, 1 Januari 1999, 19 (1): 456-463
-
NEUROSCIENCE: Mendapatkan Perhatian Otak Sains, 3 Oktober 1997, 278 (5335): 35-37
-
Korelasi Dopaminergik Ketegasan Khusus Spesifik di Kortex Prefrontal Medial dan Nucleus Accumbens of the Rat Jurnal Neurosains, 1 Oktober 1999, 19 (19): RC29