Mga Diyalogo sa Clin Neurosci. Disyembre 2013;15(4):431-43.
abstract
Sa kabila ng kahalagahan ng maraming psychosocial factor, sa kaibuturan nito, ang adiksyon sa droga ay may kasamang prosesong biyolohikal: ang kakayahan ng paulit-ulit na pagkakalantad sa isang drogang inaabuso na magdulot ng mga pagbabago sa isang mahinang utak na nagtutulak sa mapilit na paghahanap at pag-inom ng droga, at pagkawala ng kontrol sa paggamit ng droga, na tumutukoy sa isang estado ng adiksyon. Dito, susuriin natin ang mga uri ng molecular at cellular adaptation na nangyayari sa mga partikular na rehiyon ng utak upang mamagitan sa mga abnormalidad sa pag-uugali na nauugnay sa adiksyon. Kabilang dito ang mga pagbabago sa ekspresyon ng gene na nakamit sa bahagi sa pamamagitan ng mga mekanismo ng epigenetic, plasticity sa neurophysiological functioning ng mga neuron at synapses, at kaugnay na plasticity sa neuronal at synaptic morphology na bahaging namamagitan sa binagong neurotrophic factor signaling. Ang bawat isa sa mga uri ng mga pagbabagong dulot ng droga ay maaaring tingnan bilang isang anyo ng "cellular o molecular memory." Bukod dito, kapansin-pansin na ang karamihan sa mga anyo ng plasticity na nauugnay sa adiksyon ay halos kapareho ng mga uri ng plasticity na nauugnay sa mas klasikong anyo ng "behavioral memory," marahil ay sumasalamin sa limitadong repertoire ng mga mekanismo ng adaptive na magagamit ng mga neuron kapag nahaharap sa mga hamon sa kapaligiran. Panghuli, ang mga adaptasyong molekular at selular na may kaugnayan sa adiksyon ay kinabibilangan ng halos parehong mga rehiyon ng utak na namamagitan sa mas klasikong mga anyo ng memorya, na naaayon sa pananaw na ang mga abnormal na alaala ay mahahalagang tagapagtulak ng mga sindrom ng adiksyon. Ang layunin ng mga pag-aaral na ito na naglalayong ipaliwanag ang molekular at selular na batayan ng adiksyon sa droga ay upang kalaunan ay bumuo ng mga pagsusuring diagnostic na nakabatay sa biyolohikal, pati na rin ang mas epektibong mga paggamot para sa mga sakit sa adiksyon.
pagpapakilala
Ang adiksyon sa droga, na maaaring tukuyin bilang ang mapilit na paghahanap at paggamit ng droga sa kabila ng matinding bunga o pagkawala ng kontrol sa paggamit ng droga, ay sanhi ng pangmatagalang mga pagbabagong dulot ng droga na nangyayari sa ilang bahagi ng utak. 1 Gayunpaman, ilang indibidwal lamang ang sumusuko sa adiksyon sa harap ng paulit-ulit na pagkakalantad sa droga, habang ang iba ay may kakayahang gumamit ng droga nang walang ingat at makatakas sa isang addiction syndrome. Ang mga genetic factor ay bumubuo sa humigit-kumulang 50% ng indibidwal na pagkakaiba-iba na ito sa kahinaan sa adiksyon, at ang antas ng pagmamana na ito ay totoo para sa lahat ng pangunahing uri ng mga nakakahumaling na droga, kabilang ang mga stimulant, opiates, alkohol, nikotina, at cannabinoids . 2 Hindi pa posible na matukoy ang karamihan sa mga gene na bumubuo sa genetic risk na ito, malamang dahil sa pagkakasangkot ng marahil daan-daang genetic variations na nagbubuod sa isang indibidwal upang magbigay ng kahinaan sa adiksyon (o, sa ibang mga indibidwal, resistensya).
Ang natitirang 50% ng panganib ng adiksyon ay dahil sa maraming salik sa kapaligiran, na nangyayari sa buong buhay, na nakikipag-ugnayan sa genetic composition ng isang indibidwal upang maging mahina siya sa adiksyon sa mas malaki o mas maliit na lawak. Maraming uri ng mga salik sa kapaligiran ang nasangkot sa adiksyon, kabilang ang mga psychosocial stress, ngunit sa ngayon ang pinakamalakas na salik ay ang pagkakalantad sa isang droga mismo. Ang ilang mga "gateway" na droga, lalo na ang nikotina, ay ipinakita na nagpapataas ng kahinaan ng isang tao sa isang adiksyon sa ibang droga.3 Bukod dito, dumarami ang ebidensya na, sa kabila ng iba't ibang genetic na panganib para sa adiksyon sa buong populasyon, ang pagkakalantad sa sapat na mataas na dosis ng isang droga sa mahabang panahon ay maaaring magpabago sa isang taong may medyo mas mababang genetic loading tungo sa isang adik.4
Malaki ang naisakatuparan sa nakalipas na dalawang dekada sa pagtukoy sa magkahiwalay na rehiyon ng utak na mahalaga sa pag-mediate sa isang addiction syndrome, pati na rin ang mga uri ng pagbabago sa antas ng molekular at cellular na dulot ng mga droga sa mga rehiyong ito upang maging batayan ng mga pangunahing aspeto ng adiksyon. 1 , 5 Ang circuit na nakatanggap ng pinakamaraming atensyon ay tinutukoy bilang mesolimbic dopamine system, na kinabibilangan ng mga dopamine neuron sa ventral tegmental area (VTA) ng midbrain innervating medium spiny neurons sa nucleus accumbens (NAc, isang bahagi ng ventral striatum). Ang mga VTA neuron na ito ay nag-i-innervate din ng maraming iba pang rehiyon ng forebrain, kabilang ang hippocampus, amygdala, at prefrontal cortex (PFC).
Makatuwiran na isaalang-alang ang mga mekanismong ito ng pagkaadik na dulot ng droga sa aklat na ito tungkol sa memorya para sa tatlong magkakapatong na dahilan.
- Una, ang lahat ng mga adaptation na sapilitan sa droga ay makikita bilang mga uri ng "molekular o cellular memory:" ang selula ng nerve na sumasailalim sa iba't ibang mga pagbabago ay bunga ng pagkakalantad sa gamot at samakatuwid ay tumutugon nang magkakaiba sa parehong gamot na iyon, sa iba pang mga gamot, o sa isang maraming iba pang mga stimuli bilang isang resulta.
- Pangalawa, ito ay kagiliw-giliw na marami, marahil karamihan, ng mga uri ng mga pagbabago na nauugnay sa isang estado ng addiction (halimbawa, binago ang pagkasalin ng gene, epigenetics, synaptic at buong plasticity ng cell, at neuronal morpolohiya at neurotrophic na mekanismo) ay isinangkot din sa mga tradisyunal na anyo ng "memory ng pag-uugali" tulad ng spatial memory, takot sa conditioning, at conditioning ng operant, at iba pa.
- Ikatlo, kabilang sa mga rehiyon ng utak na apektado ng mga droga ng pang-aabuso ay ang mga pangunahing sangkap ng neural para sa memory ng pag-uugali, kabilang ang hippocampus, amygdala, at PFC. Nagtatampok ito sa pagtaas ng pagkaunawa na ang ilan sa mga pinakamahalagang katangian ng pagkagumon ay nakikita nang clinically (halata, labis na paghahangad sa droga at pagbabalik sa dati) ay nagpapakita ng mga abnormalidad sa tradisyunal na mga circuits ng memorya, na may mga pangmatagalang alaala ng karanasan sa droga na nagsisilbi bilang mabigat na mga driver ng patolohiya sa pagkagumon.4,7,8 Sa kabaligtaran, ang mga rehiyon ng gantimpala ng utak (hal., VTA at NAc) ay potensyal na nakakaimpluwensya sa memorya ng pag-uugali.
Ang artikulong ito ay nagbibigay ng pangkalahatang-ideya ng mga pangunahing uri ng mga pagbabago sa molekular at selula na nangyayari sa ilang rehiyon ng utak sa mga modelo ng adiksyon sa hayop, na nakatuon sa mga nucleus accumbens kung saan ang karamihan sa impormasyon ay kasalukuyang makukuha. Mahalaga, naging posible na patunayan ang ilan sa mga pagbabagong ito sa mga adiksyon ng tao batay sa mga pag-aaral ng mga utak pagkatapos ng kamatayan. Sa kabila ng katotohanan na ang mga droga ng pang-aabuso ay may magkakaibang istrukturang kemikal at kumikilos sa magkakaibang target na protina, kapansin-pansin na maraming kilalang adaptasyon na nauugnay sa adiksyon ay karaniwan sa marami, at sa ilang mga kaso lahat, mga droga ng pang-aabuso at malamang na nag-aambag sa mga ibinahaging katangian ng isang addiction syndrome . 4 , 9 Sa kabaligtaran, maraming iba pang mga adaptasyon na dulot ng droga ay partikular sa isang partikular na gamot at maaaring mamagitan sa mas natatanging mga aspeto ng isang partikular na adiksyon. Nakatuon kami rito sa mga stimulant at opiate na droga ng pang-aabuso, na nagdudulot ng mas dramatikong epekto sa mga modelo ng hayop kumpara sa iba pang mga gamot. Itinatampok din namin ang mahahalagang lugar para sa pananaliksik sa hinaharap na higit na magpapataas ng aming kaalaman sa mga addiction syndrome at isasalin ang mga pagsulong na ito sa pinahusay na mga diagnostic test at paggamot.
Transcriptional at epigenetic mechanisms
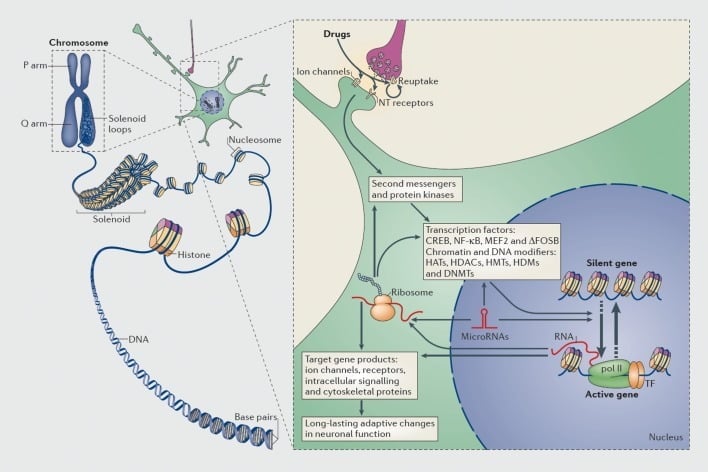
Ang kaalaman na ang mga adik ay maaaring manatili sa mas mataas na panganib na bumalik sa dati sa kabila ng mga taon ng pag-iwas ay nangangahulugan na ang adiksyon ay kinabibilangan ng mga pagbabago sa utak na dulot ng droga na maaaring maging napakatatag. Ito ay humantong sa ilang grupo na isaalang-alang ang mga pagbabago sa ekspresyon ng gene bilang isang mahalagang bahagi ng proseso ng adiksyon ( Larawan 1 ). Alinsunod dito, ang mga pag-aaral ng mga kandidatong gene o mga imbestigasyon sa buong genome na kinasasangkutan ng mga DNA microarray at kamakailan lamang ang RNA-seq (high-throughput sequencing ng mga ipinahayag na RNA) ay nakatukoy ng maraming gene na ang ekspresyon ay nababago sa isang partikular na rehiyon ng utak sa mga modelo ng adiksyon ng daga at primate at sa mga adik sa tao (hal., mga ref 10-17). Ang mga halimbawa ng naturang mga gene ay tatalakayin sa mga kasunod na seksyon ng pagsusuring ito.
Mga mekanismo ng transcriptional at epigenetic regulation ng mga droga ng pang-aabuso. Sa eukaryotic cells, ang DNA ay organisado sa pamamagitan ng pagpapaputi sa paligid ng histone octomers upang bumuo ng nucleosomes, na kung saan ay pagkatapos ay isinaayos at pinalalabasan upang bumuo ng chromosomes (kaliwang bahagi). Sa pamamagitan lamang ng pansamantalang unraveling compacted chromatin ang DNA ng isang partikular na gene ay mapupuntahan sa transcriptional machinery. Ang mga gamot ng pang-aabuso ay kumikilos sa pamamagitan ng mga target na synaptic tulad ng reuptake mekanismo, ion channel, at neurotransmitter (NT) receptor upang baguhin ang intracellular signaling cascades (kanang bahagi). Ito ay humahantong sa pag-activate o pagsugpo ng mga kadahilanan ng pagkasalin (TFs) at ng maraming iba pang mga target na nukleyar, kabilang ang mga protinang chromatin-regulatory (ipinakita sa pamamagitan ng makapal na mga arrow); ang mga detalyadong mekanismo na kasangkot sa synaptic regulasyon ng chromatin-regulasyon protina mananatiling mahina naiintindihan. Ang mga prosesong ito sa huli ay magreresulta sa induksiyon o panunupil ng mga partikular na genes, kabilang ang mga para sa mga noncoding RNAs tulad ng microRNAs; Ang binagong expression ng ilan sa mga genes na ito ay maaaring mag-iba pang pagkontrol ng gene transcription. Iminumungkahi na ang ilan sa mga pagbabagong sapilitan ng bawal na gamot sa antas ng chromatin ay sobrang matatag at sa gayon ay pinapahalagahan ang mga pangmatagalang pag-uugali na tumutukoy sa pagkagumon. CREB, paikot na AMP-tumutugon elementong nagbubuklod na protina; DNMTs, DNA methyltransferases; HATs, histone acetyltransferases; HDACs, histone deacetylases; HDMs, histone demethylases; HMTs, histone methyltransferases; MEF2, factor na tagataguyod ng myocyte na 2; NF-kB, nuclear factor-KB; polyo II, RNA polymerase II. Nalikha mula ref 44: Robison AJ, Nestler EJ. Transcriptional at epigenetic na mekanismo ng pagkagumon. Nat Rev Neurosci. 2011; 12: 623-637.
Gayundin, maraming uri ng mga transcription factor—mga protina na nagbibigkis sa mga regulatory region ng mga gene at sa gayon ay nagpapataas o nagpapababa sa transcription ng mga gene na iyon—ang nasangkot sa pamamagitan ng pangmatagalang epekto ng drug of abuse sa gene expression sa utak . Kabilang sa mga kilalang halimbawa ang CREB (cAMP response element binding protein), ΔFosB (isang Fos family transcription factor), NFkB (nuclear factor kB), MEF2 (myocyte enhancing factor-2), at glucocorticoid receptors, bukod sa ilan pang iba. 5 , 10 , 18-22 Nagiging posible nang maunawaan ang mga cellular signaling pathway kung saan pinapagana ng mga drug of abuse ang isang partikular na transcription factor sa utak at upang maging sanhi ng pag-uugnay ng naturang activation sa mga target gene ng transcription factor na iyon at sa mga partikular na aspeto ng pag-uugali ng adiksyon (tingnan ang Figure 1) . Ang pag-unlad na ito ay inilalarawan sa pamamagitan ng pagsasaalang-alang sa CREB at ΔFosB, na siyang pinakamahusay na pinag-aralang transcription factor sa mga modelo ng adiksyon.
CAMP Response element na nagbubuklod na protina
Ang mga pampalakas na pampalakas at pang-aapi ay ginagawang aktibo CREB sa ilang mga rehiyon ng utak na mahalaga para sa pagkagumon, kabilang ang kitang-kita sa NAc.23,24 Ang CREB ay kilala na aktibo sa iba pang mga system sa pamamagitan ng cAMP, Ca2+, at pathways na kadahilanan ng paglaki,25 at hindi pa alam kung alin sa mga ito ang namamagitan sa pag-activate nito sa NAc sa pamamagitan ng mga droga ng pang-aabuso. Ang pag-activate ng droga ng CREB sa NAc ay ipinapakita na kumakatawan sa isang klasikong negatibong feedback na mekanismo, kung saan nagsisilbi ang CREB upang mabawasan ang pagiging sensitibo ng isang hayop sa mga gantimpalang epekto ng mga gamot na ito (pagpapaubaya) at upang mamagitan ng isang negatibong pang-emosyonal na kalagayan sa panahon ng pag-alis ng gamot (pagpapakandili).18,26,27 Ang mga epekto na ito ay ipinakita kamakailan upang mapadali ang nadagdagang pagdedeklara ng sarili ng droga at pagbabalik sa dati, siguro sa pamamagitan ng isang proseso ng negatibong pampalakas.28 Ang mga pagkilos na ito ng CREB ay tila kasangkot ang parehong mga pangunahing subtypes ng NAc medium spiny neurons, ang mga na express nakararami D1 kumpara sa D2 dopamine receptors.24 INterestingly, isang malaking katawan ng panitikan ay nagpakita na ang CREB, kumikilos sa hippocampus at amygdala, ay isang pangunahing titing sa pang-alaala sa pag-uugali.29-31 Ang malawak na papel na ito sa pagkagumon at memory ng pag-uugali ay malamang na sumasalamin sa katotohanang ang mga neuron ay puno ng isang may hangganan na bilang ng mga molekular na mekanismo kung saan upang umangkop sa isang patuloy na pagbabago ng kapaligiran.
Ang mga target gene para sa CREB na namamagitan sa behavioral phenotype na ito ay natukoy sa pamamagitan ng mga genome-wide assay pati na rin ang mas piling mga pagsisikap. 10 , 18 , 32 Ang isang halimbawa ay ang opioid peptide dynorphin: ang stimulant induction ng dynorphin expression sa NAc neurons, na namamagitan sa pamamagitan ng CREB, ay nagpapataas ng dynorphin activation ng k opioid receptors sa VTA dopamine neurons at sa gayon ay pinipigilan ang dopaminergic transmission sa NAc at pinapahina ang reward . 18 Maraming iba pang target ng CREB ang naipakita na mahalaga para sa drug-induced synaptic plasticity, gaya ng tinalakay sa ibaba. Bagama't ang CREB ay na-activate din sa ilang iba pang rehiyon ng utak ng mga stimulant at opiates, 23 , 24 mas kaunti ang nalalaman tungkol sa mga kahihinatnan sa pag-uugali ng epektong ito at ang mga target gene kung saan nangyayari ang mga ito. Gayundin, mas kaunti ang nalalaman tungkol sa papel ng CREB sa namamagitan sa mga aksyon ng iba pang mga droga na ginagamit. 19
ΔFosB
Ang matinding pagkakalantad sa halos anumang drogang ginagamit ay nagdudulot ng lahat ng transcription factor ng pamilya Fos sa NAc at ilang iba pang rehiyon ng utak. Ang induction na ito ay mabilis ngunit napakadali ring lumilipas, kung saan ang mga antas ng protina ng Fos ay bumabalik sa normal sa loob ng 8 hanggang 12 oras. Natatangi sa mga protina ng pamilya Fos na ito ang ΔFosB, isang pinutol na produkto ng gene na FosB, na dahil sa hindi pangkaraniwang katatagan nito, ay unti-unting naiipon sa pamamagitan ng paulit-ulit na pagkakalantad sa droga at nagiging pangunahing protina ng Fos na ipinapahayag sa ilalim ng mga kondisyong ito. 22 , 33 Bukod dito, dahil sa katatagang ito, ang mga antas ng ΔFosB ay nagpapatuloy nang ilang linggo pagkatapos ng paghinto sa paggamit ng droga. Ang ganitong talamak na induction ng ΔFosB ay naipakita na para sa halos lahat ng drogang ginagamit 34 at, para sa karamihan ng mga droga, ay pumipili para sa mga neuron ng Dl-type NAc. 34 , 35 Naipakita rin ito sa mga adik sa droga. 35 Malaking kalipunan ng literatura ang nagpakita na ang ganitong ΔFosB induction sa D 1- type NAc neurons ay nagpapataas ng sensitivity ng isang hayop sa droga pati na rin sa natural na mga gantimpala at nagtataguyod ng drug self-administration, marahil sa pamamagitan ng isang proseso ng positibong reinforcement (tingnan ang mga ref 34 hanggang 38) . Kapansin-pansin, ang drug induction ng ΔFosB sa NAc ay mas dramatiko sa mga nagdadalaga na hayop, isang panahon ng mas mataas na kahinaan sa adiksyon , 39 at ang induction nito sa pamamagitan ng nikotina ay ipinakita na namamagitan sa gateway-like enhancement ng cocaine reward ng nikotina . 40
Tungkol naman sa CREB, maraming target genes para sa ΔFosB ang natukoy sa NAc sa pamamagitan ng paggamit ng candidate gene at genome-wide approach. 10 , 32 Habang ang CREB ay nagdudulot ng dynorphin, pinipigilan ito ng ΔFosB, na nakakatulong sa mga pro-reward effect ng ΔFosB . 38 Ang isa pang target ng ΔFosB ay ang cFos: habang naiipon ang ΔFosB sa paulit-ulit na pagkakalantad sa gamot, pinipigilan nito ang c-Fos at nakakatulong sa molecular switch kung saan ang ΔFosB ay piling na-induce sa chronic drug-treated state . 41 Maraming iba pang target ng ΔFosB ang naipakita na namamagitan sa kakayahan ng ilang partikular na droga na magdulot ng synaptic plasticity sa NAc at mga kaugnay na pagbabago sa dendritic arborization ng NAc medium spiny neurons, gaya ng tatalakayin sa ibaba.
Ang mga functional na kahihinatnan ng ΔFosB induction sa ibang mga rehiyon ng utak ay hindi pa gaanong nauunawaan, bagaman ang induction nito sa orbitofrontal cortex (OFC) ay pinag-aralan nang detalyado. Dito, ang ΔFosB ay namamagitan sa tolerance na nangyayari sa mga cognitive-disrupting effects ng cocaine sa panahon ng isang kurso ng talamak na pagkakalantad, at ang adaptasyong ito ay nauugnay sa pagtaas ng cocaine self-administration . 42 , 43
Ang mga genome-wide assay ay nagmungkahi ng ilang potensyal na target gene na namamagitan sa mga epektong ito.42 Sa kabila ng mga natatanging temporal na katangian ng ΔFosB, at ang kaalaman na ito ay na-induce sa mga tradisyonal na memory circuit (hal., hippocampus), wala pang nagagawang paggalugad sa papel ng ΔFosB sa behavioral memory, isang kawili-wiling paksa para sa pananaliksik sa hinaharap.
Epigenetic mekanismo
Sa mga nakaraang taon, ang mga pag-aaral ng transkripsyon ay mas lalong nasulong patungo sa epigenetics 44 (tingnan ang Figure 1) , na maaaring malawak na tukuyin bilang isang pagbabago sa ekspresyon ng gene na nangyayari nang walang pagbabago sa sequence ng DNA. Kinokontrol ng mga mekanismong epigenetic ang packaging ng DNA sa loob ng nucleus ng isang cell sa pamamagitan ng mga interaksyon nito sa mga histone at maraming iba pang uri ng mga nuclear protein, na sama-samang bumubuo sa chromatin. Ang ekspresyon ng gene ay kinokontrol ng estado ng packaging na ito sa pamamagitan ng covalent modification ng mga histone, iba pang mga protina, at DNA mismo. Bilang ilang halimbawa lamang, ang acetylation ng mga histone ay may posibilidad na itaguyod ang pag-activate ng gene, ang methylation ng mga histone ay maaaring magsulong ng pag-activate o pagsupil ng gene depende sa residue ng Lys na sumasailalim sa pagbabagong ito, at ang methylation ng DNA ay karaniwang nauugnay sa pagsupil ng gene bagaman ang ilang mga variant na anyo ng methylation (hal., 5-hydroxymethylation) ay maaaring nauugnay sa pag-activate ng gene.
Ang epigenetics ay isang kaakit-akit na mekanismo dahil, sa ibang mga sistema, halimbawa, ang developmental at cancer biology, ang ilang mga pagbabago sa epigenetic ay maaaring maging permanente. Dahil dito, ang epigenetics ay isinulong kapwa sa mga modelo ng pagkatuto at memorya (hal., mga ref 45-48) pati na rin sa adiksyon; 44 , 49 sa parehong sistema, naiulat ang mga malalim na pagbabago sa histone acetylation at methylation at sa DNA methylation. Bilang isang halimbawa lamang, ang histone methyltransferase, G9a, ay sangkot sa parehong memorya 50 at adiksyon. 51 , 52 Sa mga modelo ng adiksyon, ang ekspresyon ng G9a ay bumababa sa NAc bilang tugon sa mga stimulant o opiate na gamot na inaabuso at ipinakita na pinapahusay nito ang mga kapaki-pakinabang na epekto ng mga gamot na ito . 51 , 52 Kapansin-pansin, ang pagsugpo sa cocaine ng G9a ay namamagitan sa ΔFosB. Ang G9a ay nagpapabilis sa dimethylation ng Lys9 ng histone H3 (H3K9me2), isang pangunahing tagapamagitan ng pagsugpo sa gene. Ang ChIP-chip o ChIP-seq (chromatin immunoprecipitation na sinusundan, ayon sa pagkakabanggit, ng mga promoter chip o high-throughput sequencing) ay ginamit upang makakuha ng mga genome-wide na mapa ng mga gene sa NAc na nagpapakita ng binagong H3K9me2 pagkatapos ng pagkakalantad sa stimulant o opiate. 32 , 52 , 53 Sa pamamagitan ng pagpapatong-patong ng mga listahan ng gene na ito sa mga listahan ng mga pagbabago sa ekspresyon ng gene sa buong genome, at sa mga genome-wide na mapa ng maraming iba pang anyo ng mga pagbabago sa epigenetic (hal., ΔFosB binding, CREB binding, iba pang mga pagbabago sa histone, atbp.), 32 , 53 dapat posible na matukoy ang isang lalong kumpletong hanay ng mga gene na kinokontrol ng mga droga ng pang-aabuso at maunawaan ang pinagbabatayan na mga mekanismo ng epigenetic na kasangkot.
Ang isa pang anyo ng regulasyong epigenetic na sangkot sa memorya at adiksyon ay ang pagbuo ng mga microRNA. Ang maliliit at hindi naka-coding na RNA na ito ay nagbibigkis sa mga komplementaryong rehiyon ng mga mRNA at sa gayon ay pinipigilan ang kanilang pagsasalin o nagdudulot ng kanilang pagkasira. Ang pagtanggal ng Argonaut, isang protina na mahalaga para sa pagproseso ng mga miRNA, ay nagbabago ng mga tugon sa pag-uugali sa cocaine, na may natatanging mga epekto na naobserbahan para sa mga D1- kumpara sa D2-type medium spiny neuron. 54 Ilang partikular na miRNA ang ipinakita rin na kinokontrol ng pagkakalantad sa gamot at, kaugnay nito, nakakaimpluwensya sa mga tugon sa pag-uugali sa mga gamot (hal., mga ref 55,56). Magiging kapana-panabik sa mga pag-aaral sa hinaharap na matukoy ang mga target ng mRNA ng mga miRNA na ito at makilala kung paano nila naaapektuhan ang proseso ng adiksyon.
Synaptic plasticity
Ang parehong pangkalahatang uri ng mga synaptic modification sa glutamatergic synapses, na naiugnay sa hippocampus at amygdala sa behavioral memory (tingnan ang iba pang mga artikulo sa isyung ito), ay ipinakita rin na nangyayari sa mga rehiyon ng gantimpala ng utak sa mga modelo ng adiksyon at mahalaga sa pamamagitan ng proseso ng adiksyon . 57 , 58 Ang ganitong drug-induced synaptic plasticity ay inilarawan na sa ilang mga rehiyon ng utak, gayunpaman, nakatuon kami rito sa NAc kung saan ang karamihan sa pananaliksik ay nakatuon hanggang sa kasalukuyan ( Larawan 2 ).
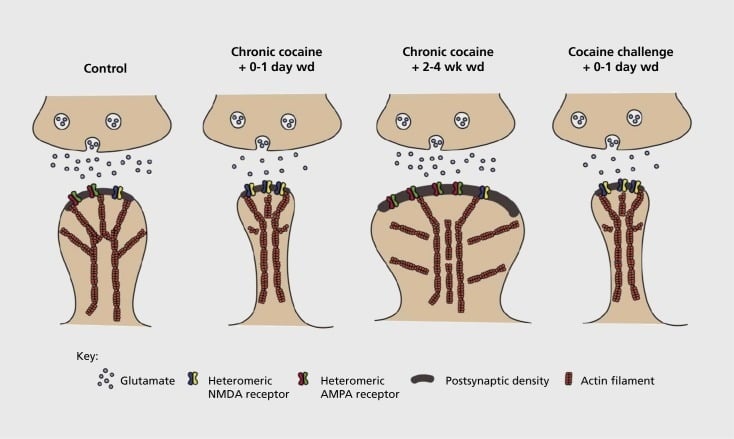
Modelo ng synaptic at estruktural plasticity kaugnay sa addiction sa nucleus accumbens (NAc). Ang talamak na pagkakalantad sa kokaina ay nagreresulta sa isang oras na nakasalalay at lumilipas na muling pagbubuo ng α-amino-3-hydroxy-5-methyl-4-isoxazolepropionic acid (AMPA) at N-methyl-D-aspartic acid (NMDA) glutamate receptors sa NAc medium spiny neuron (MSN) synapses, pati na rin ang mga pagbabago sa istruktura sa spine head ng NAc MSNs na nauugnay sa mga natatanging porma ng synaptic plasticity. Halimbawa, ang talamak na cocaine ay nagpapahiwatig ng pagpapahayag ng ibabaw ng mga receptor ng NMDA, tahimik na pagbuo ng synapse at pangmatagalang depression (LTD) sa maagang mga punto ng oras ng pag-withdraw. Sa panahon ng mas mahabang withdrawal (wd), ang mga synaptic na mga pagbabago reverse na ang resulta ay nadagdagan pagpapahayag ng ibabaw AMPA receptors, isang pagpapatatag ng synapse sa isang hugis ng kabute-shaped at pang-matagalang potentiation (LTP). Ang mga epekto mabilis na bumalik muli sa pagkakalantad sa isang hamon na dosis ng cocaine na humahantong sa restructuring ng gulugod sa manipis na spines at isang depresyon ng synaptic lakas.
Ipinakita ng mga unang eksperimento na ang paulit-ulit na pagkakalantad sa mga stimulant na gamot na ginagamit ay nagdudulot ng isang estado na parang LTD (pangmatagalang depresyon) sa mga glutamatergic synapses sa NAc. 59 Gayunpaman, ipinakita ng mas kamakailang pag-aaral na ang ganitong plasticity ay lubos na nakadepende sa oras, kung saan ang LTD ay nangyayari nang maaga pagkatapos ng huling pagkakalantad sa cocaine ay umuunlad sa isang estado na parang LTP (pangmatagalang potentiation) pagkatapos ng mas mahabang oras ng pag-withdraw. 60 , 61 Ang gawaing ito, na hanggang sa kasalukuyan ay pangunahing isinasagawa gamit ang mga gamot na ibinibigay ng imbestigador—kumpara sa mga gamot na ibinibigay sa sarili, ay nagbigay-kahulugan sa pangangailangan para sa mas sistematikong pagsisiyasat sa mga modelo ng self-administration na sumusubaybay sa mga anyo ng synaptic plasticity na nangyayari sa mga glutamatergic synapses sa NAc sa isang detalyadong kurso ng oras mula sa pagkuha ng self-administration hanggang sa pagpapanatili nito, sa pamamagitan ng iba't ibang oras ng pag-withdraw at pagkalipol, at bilang tugon sa mga stimuli na nagdudulot ng relapse. Ang pag-aaral hanggang sa kasalukuyan ay nagbigay-kahulugan din sa ilan sa mga mekanismong molekular na nakakatulong sa drug-induced synaptic plasticity na ito, kabilang ang pagdadala ng mga AMPA receptor sa synapse na marahil ay bahaging namamagitan sa pamamagitan ng CaMKII (Ca 2+ /calmodulin-dependent protein kinase II) phosphorylation ng ilang AMPA receptor subunits pati na rin ang binagong ekspresyon ng AMPA receptor subunits (hal. 60,62-65, Figures 2 at 3 ). Ang papel ng CREB at ΔFosB ay nasangkot sa mga phenomena na ito, pati na rin sa mga kaugnay na pagbabago sa morpolohiya ng glutamatergic synapses (tingnan sa ibaba). Halimbawa, ang GluAl ay isang target para sa CREB sa NAc, kung saan ang GluA2 at CaMKII ay parehong target ng ΔFosB, sa rehiyon ng utak na ito . 35 , 36 , 66 , 67 Sa hinaharap, mahalagang iugnay ang mga partikular na adaptasyon sa mga pagbabagong umaasa sa oras sa synaptic function at mga katangian ng pag-uugali ng adiksyon.
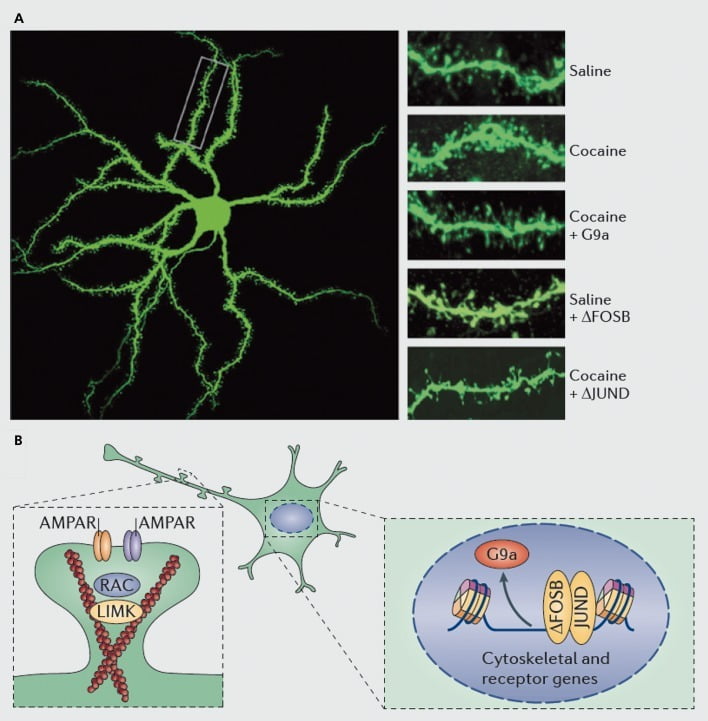
Ang mga mekanismo ng Molecular na pinagbabatayan ng cocaine induction ng dendritic spines sa nucleus accumbens (NAc) medium spiny neurons. A) nagpapakita ng pagtaas ng dulot ng cocaine na dendritic number ng gulugod na maaaring ma-block ng viral overexpression ng G9a o JunD (isang kalaban ng AP1-medium na transcription), o ginaya ng viral overexpression ng FosB. B) Ang regulasyon ng trafficking ng AMPA receptor (AMPAR) at ng aktin cytoskeleton (kaliwa), pati na rin ang regulasyon ng paglilipat ng mga glutamate receptor at mga protina na kumokontrol na aktin (hal., Sa pamamagitan ng ΔFosB, kanan) ay ipinakita upang gampanan ang mahahalagang papel sa namamagitan sa regulasyon ng cocaine ng NAc dendritic spine density. UMK, LIM domain kinase; RAC, kaugnay sa Ras na C3 botulinum toxin substrate.
Dahil sa mga bagong kagamitang pang-eksperimento, sa unang pagkakataon ay posible na matukoy nang may pagtaas ng katumpakan kung aling mga partikular na circuit ang nagpapakita ng mga ganitong uri ng synaptic plasticity at kung anong mga abnormalidad sa pag-uugali ang kanilang namamagitan. Halimbawa, ang shell at core subregions ng NAc ay nagpapakita ng mga pagkakaiba sa drug-induced synaptic plasticity, gayundin ang D1- versus D2-type medium spiny neurons sa loob ng bawat subregion. 60 , 63 , 64 , 67 Gayundin, ang mga optogenetic na eksperimento ay nagbigay ng bagong pananaw sa kontribusyon ng isang partikular na anyo ng synaptic plasticity (hal., LTD) sa mga partikular na populasyon ng glutamatergic synapses sa NAc, halimbawa, ang mga nagmumula sa medial PFC versus basolateral amygdala versus ventral subiculum (ang pangunahing output ng hippocampus). 68-70 Sa huli , kakailanganing i-overlay ang mga drug-induced molecular adaptation sa bawat isa sa mga afferent neuron na ito ng mga synapse-specific adaptation na nangyayari sa kanilang mga postsynaptic dendrites upang makabuo ng kumpletong pag - unawa kung paano binabago ng mga droga ang circuitry ng utak upang itulak ang mga partikular na aspeto ng estado ng pagkalulong. Ang pagsisikap na ito ay mangangailangan ng mas malawak na pagpapahalaga sa plasticity na dulot ng droga sa mga inhibitory synapses sa loob ng mga rehiyon ng utak na ito, isang lugar na hindi gaanong nabigyan ng pansin hanggang sa kasalukuyan. 65
Buong cell plasticity
Bagama't ang karamihan sa mga pananaliksik na kinasasangkutan ng mga pagbabagong neurophysiological sa mga neuron sa mga penomena ng pag-abuso sa droga, tulad ng sa mga penomena ng pagkatuto at memorya, ay nakatuon sa synaptic plasticity, dumarami rin ang ebidensya para sa kahalagahan ng plasticity ng buong cell. Ang plasticity ng buong cell, na tinutukoy din bilang homeostatic plasticity, 71 ay nagsasangkot ng mga pagbabago sa intrinsic excitability ng isang buong nerve cell sa paraang hindi ito partikular sa synapse. Dahil ang ilang mga katangian ng pagkalulong sa droga ay kinabibilangan ng pinahusay o nabawasang sensitivity sa isang gamot, makatuwiran na ang pinahusay o nabawasang electrical excitability ng ilang mga nerve cell ay nakakatulong sa mga behavioral adaptation na ito . 5
Ang pinakamahusay na naitatag na halimbawa ng plasticity ng buong selula sa isang drogang inaabuso ay ang kakayahan ng mga talamak na opiates na pataasin ang intrinsic excitability ng mga noradrenergic neuron ng locus coeruleus (LC ). 72 Ang pagtaas ng excitability na ito ay namamagitan sa pamamagitan ng CREB at ang induction nito ng ilang isoform ng adenylyl cyclase, na nagtutulak ng pagtaas ng pagpapaputok ng mga LC neuron marahil sa pamamagitan ng induction ng mga Na+ channel. 72-75 Ang hyperexcitabilty na ito ng mga LC neuron ay kumakatawan sa isang klasikong mekanismo ng tolerance at dependence at nagtutulak ng ilan sa mga palatandaan at sintomas ng opiate withdrawal. Kapansin-pansin, ang CREB ay namamagitan sa isang katulad na anyo ng plasticity ng buong selula sa mga NAc medium spiny neuron, na nagiging hyperexcitable din sa pamamagitan ng talamak na pagkakalantad sa mga drogang inaabuso sa pamamagitan ng CREB. 76 Kaya naman magiging kritikal sa mga imbestigasyon sa hinaharap na maunawaan kung paano ang CREB-mediated synaptic plasticity ng glutamatergic synapses sa NAc medium spiny neurons 65 , 66 ay tumutugma sa CREB-mediated intrinsic hyperexcitability ng mga neuron na ito 76 upang makontrol ang mga katangiang pang-asal ng adiksyon.
Ang isa pang halimbawa ng plasticity ng buong selula sa mga modelo ng adiksyon ay ang hyperexcitability ng mga VTA dopamine neuron na nangyayari pagkatapos ng talamak na pagkakalantad sa mga opiate na gamot o pag-abuso ( Larawan 4 ). 77 , 78 Ang adaptasyong ito, na naiugnay sa mga pagbabagong morpolohikal sa mga nerve cell na ito (tingnan ang susunod na seksyon), ay hindi namamagitan sa CREB ngunit nakakamit sa halip sa pamamagitan ng regulasyon ng mga neurotrophic signaling cascades, gaya ng inilarawan sa ibaba.

Modelo ng Paggawa ng mga Talamak na Adaptasyon na Induced ng Morphine sa mga neuron ng ventral tegmental area (VTA) dopamine. Binabawasan ng Talamak na Morphine ang laki ng VTA dopamine (DA) soma ngunit pinapataas ang neuronal excitability, habang ang transmisyon ng dopamine sa nucleus accumbens ay nababawasan. Ang netong epekto ng morphine ay isang hindi gaanong tumutugon na landas ng gantimpala, ibig sabihin, ang pagpapaubaya sa gantimpala. Ang downregulation ng IRS2-AKT signaling sa VTA ay namamagitan sa mga epekto ng Talamak na Morphine sa laki ng soma at electrical excitability; ang epekto sa excitability ay namamagitan sa pamamagitan ng nabawasang γ-aminobutyric acid (GABA)A currents at pagsugpo sa ekspresyon ng K' channel . Ang downregulation ng aktibidad ng mTORC2 na dulot ng Morphine sa VTA ay mahalaga para sa mga morphological at physiological adaptation na dulot ng Morphine pati na rin para sa pagpapaubaya sa gantimpala. Kabaligtaran ng mT0RC2, pinapataas ng Talamak na Morphine ang aktibidad ng mTORCI, na hindi nakakaimpluwensya sa mga adaptasyon na dulot ng Morphine. BDNF, neurotrophic factor na nagmula sa utak; IRS, insulin receptor substance; mTORC, mTOR complex; AKT, protein kinase B Kinuha mula sa ref 77
Morphological plasticity at neurotrophic mechanisms
Ang dumaraming ebidensya, na karamihan ay mula sa mga pag-aaral ng hippocampal at cerebral cortical neurons, ay nagpakita na ang mga pagbabago sa synaptic plasticity ay nauugnay sa mga pagbabagong morpolohikal sa mga synapses. Halimbawa, ang LTD at ang pagbuo ng mga tahimik na synapses ay nauugnay sa pagbuo ng manipis o pandak na dendritic spines, samantalang ang LTP ay nauugnay sa mas malalaki at hugis-kabute na mga spine. 79 , 80 Kaya naman kawili-wili na ang larangan ng pag-abuso sa droga ay nakatuon sa mga pagbabagong dulot ng droga sa mga dendritic spine sa loob ng >15 taon. Ang talamak na pagkakalantad sa mga stimulant na gamot na ginagamit ay nagpapataas ng dendritic spine density ng mga medium spiny neuron ng NAc, isang pagbabagong nangingibabaw sa mga Dl-type neuron . 67 , 81 , 82 Ang induction ng mga spine ay kadalasang nauugnay sa mga sensitized na tugon sa pag-uugali sa mga gamot na ito, bagaman ang ilang ebidensya ay sumasalungat sa pananaw na ito.
Gaya ng mga pag-aaral sa synaptic plasticity, mas maraming pag-aaral ang kailangan upang sistematikong tukuyin ang mga pagbabago sa mga dendritic spine na nangyayari sa panahon ng self-administration, withdrawal, at relapse ng gamot. Ang mga pag-aaral hanggang sa kasalukuyan, na kinasasangkutan ng mga gamot na iniimbestigahan at ibinibigay sa sarili, ay nagmumungkahi ng magkakaibang pagbabago sa gulugod na nagaganap sa iba't ibang oras ng withdrawal at sa NAc shell kumpara sa mga core subregion . 83-86 Mahalaga ring tukuyin ang tumpak na mga mekanismo ng molekula kung saan ang cocaine o ibang stimulant ay nagdudulot ng mga epektong ito na umaasa sa oras at partikular sa cell-type. Ang ΔFosB ay ipinakita na kapwa kinakailangan at sapat para sa induction ng mga immature spine sa mga Dl-type NAc neuron . 35 , 51 , 67 Ang ganitong regulasyon ay nangyayari kasabay ng cocaine at ΔFosB regulation ng ilang protina na kilala upang kontrolin ang reorganisasyon ng actin cytoskeleton. Bilang isang halimbawa lamang, ang transcriptional regulation ng ilang guanine nucleotide exchange factors at GTPase activating proteins ay nagpo-poise sa Rac1, isang maliit na GTPase, para sa mga panandaliang pagbaba sa aktibidad bilang tugon sa bawat pagkakalantad sa cocaine, at ang ganitong pulsatile na pagbaba sa aktibidad ng Rac1 ay naipakita na, gamit ang optogenetic control ng Rac1, upang mamagitan sa induction ng mga immature spines. 87 Ang mga epektong ito ng Racl ay malamang na nangyayari sa pamamagitan ng pagkontrol nito sa cofilin at iba pang actin regulatory proteins, na naipakita rin na namamagitan sa regulasyon ng cocaine sa paglaki ng gulugod. 87 , 88 Gayunpaman, mahalagang bigyang-diin na ito ay isa lamang pathway na kasangkot sa regulasyon ng cocaine sa mga immature spines, dahil maraming iba pang mga protina ang naipakita na gumaganap din ng mahalagang papel, kabilang ang CDK5 (cyclin-dependent kinase-5), CaMKII, NFkB, MEF2, CREB, G9a, at DNMT3 (DNA methyltransf erase 3a), para pangalanan ang ilan. 20 , 21 , 35 , 51 , 67 , 89 , 90 Kapansin-pansin, ang regulasyon ng cocaine sa ilan sa mga gene na ito, kabilang ang induction ng CDK5, CaMKII, at NFkB, at ang pagsugpo sa G9a, ay namamagitan din sa pamamagitan ng ΔFosB. 20 , 35 , 51 , 91
Nakakagulat, ang mga inaabusong gamot na opiate ay nagdudulot ng kabaligtaran na epekto at binabawasan ang dendritic spine density ng NAc medium spiny neurons . 81 Kaunti lamang ang nalalaman tungkol sa mga kahihinatnan sa pag-uugali ng adaptasyong ito at ang pinagbabatayan na mga mekanismong molekular na kasangkot. Gayunpaman, nakakagulat ang phenomenon na ito, dahil ang CREB at ΔFosB ay na-induce ng parehong stimulants at opiates at parehong sangkot sa stimulant-mediated induction ng NAc dendritic spine density . Nagtataas ito ng tanong kung paano pinipigilan ng mga opiate ang NAc spine density sa kabila ng kanilang induction ng mga salik na ito.
Ang isa pang pangunahing anyo ng morphological plasticity na nakikita sa mga modelo ng pang-aabuso sa droga ay ang pisikal na pagbawas sa laki ng cell soma ng mga VTA dopamine neuron na dulot ng talamak na pagbibigay ng opiate . 77 , 92 , 93 Isang katulad na adaptasyon ang nangyayari bilang tugon sa mga cannabinoid. 94 Ang pagliit na ito ng mga VTA dopamine neuron, na nangyayari sa opiate self-administration 93 at naitala sa mga adik sa heroin na sinuri pagkatapos ng kamatayan, 77 ay tila namamagitan sa reward tolerance at nauugnay sa nabawasang paglabas ng dopamine sa NAc . Malaking ebidensya na ngayon ang nagpapahiwatig na ang pagbawas na ito sa laki ng cell soma ay namamagitan sa pamamagitan ng opiate suppression ng brain-derived neurotrophic factor (BDNF) expression sa loob ng mga neuron na ito. Direktang iniugnay namin ang opiate-induced withdrawal ng suporta sa BDNF, at ang pagliit ng VTA neuron, sa nabawasang aktibidad ng downstream BDNF signaling cascades sa mga VTA dopamine neuron, partikular na ang nabawasang aktibidad ng IRS2 (insulin receptor substrate-2), AKT (isang serine-threonine kinase), at TORC2 (target ng rapamycin-2, na hindi sensitibo sa rapamycin). 77 , 93 Iniugnay din namin ang downregulation na ito ng BDNF signaling nang direkta sa pagtaas ng excitability na dulot ng morphine sa mga neuron na ito, gaya ng nabanggit kanina. 77 , 78 Sa katunayan, ang nabawasang laki ng cell soma at pagtaas ng excitability ay mahigpit na magkaugnay, dahil ang induction ng isa ay humahantong sa isa pa at vice versa. Ang kontrol na ito sa cell excitability ay kinabibilangan ng pagsugpo sa mga K + channel at ng GABA A current sa mga neuron na ito.
Ang papel na ito ng BDNF sa pagkontrol sa mga tugon ng morphine sa antas ng VTA ay kabaligtaran ng ibang-iba nitong pagkakasangkot sa mga aksyon ng cocaine at iba pang stimulant. Ang mga stimulant ay nagdudulot ng BDNF signaling sa NAc, isang epekto dahil sa pagtaas ng lokal na synthesis ng BDNF pati na rin ang pagtaas ng paglabas mula sa ilang afferent na rehiyon. 95 Bukod dito, ang pagtaas ng BDNF signaling sa NAc, ngunit hindi sa VTA, ay ipinakita na nagtataguyod ng mga epekto sa pag-uugali ng mga gamot na ito kabilang ang kanilang self-administration. 95 , 96 Ang kabaligtaran na regulasyon ng BDNF signaling sa VTA-NAc pathway ng mga opiates kumpara sa mga stimulant ay nagpapataas ng posibilidad na ang mga naturang pagkakaiba ay namamagitan sa kabaligtaran na regulasyon ng mga gamot sa NAc dendritic spines, isang posibilidad na kasalukuyang sinisiyasat.
Hinaharap na mga direksyon
Binibigyang-diin ng salaysay sa itaas ang napakalaking pagsulong na nagawa sa pag-unawa sa mga molekular at selular na adaptasyon na nangyayari sa mga rehiyon ng gantimpala sa utak bilang tugon sa paulit-ulit na pagkakalantad sa isang droga na inaabuso, at sa pag-uugnay ng mga indibidwal na adaptasyon sa ilang mga katangian ng pag-uugali ng mga sindrom ng pagkagumon sa mga modelo ng hayop. Sa kabila ng mga pagsulong na ito, nananatili ang mga pangunahing tanong. Karamihan sa ating umiiral na kaalaman ay nakatuon sa VTA at NAc, na may mas kaunting impormasyon na magagamit tungkol sa iba pang mga pangunahing rehiyon ng limbic na utak na mahalaga rin para sa pagkagumon sa droga. Bilang karagdagan, lahat ng mga eksperimentong demonstrasyon ng sanhing papel ng isang molekular-cellular na adaptasyon sa isang pag-uugali na may kaugnayan sa droga ay manipulahin ang mga indibidwal na adaptasyon nang paisa-isa. Ang pagmamanipula ng maraming adaptasyon nang sabay-sabay ay malinaw na mas mahirap, ngunit mahalaga rin ito, dahil alam natin na ang mga gamot ay gumagawa ng isang malaking bilang ng magkakaibang uri ng mga pagbabago kahit na sa loob ng mga indibidwal na neuron, na malamang na nagtatapos sa mga kumplikadong paraan upang maimpluwensyahan ang pag-uugali. Ang ganitong diskarte sa systems biology ay magiging mahalaga upang tuluyang mabasag ang mga biological na saligan ng pagkagumon. Panghuli, ang mga pagsisikap na maunawaan ang mga mekanismong molekular-cellular ng mga alaala na may kaugnayan sa adiksyon ay nasa punto kung saan ang lahat ng iba pang pagsisikap na maunawaan ang biyolohikal na batayan ng memorya ng pag-uugali ay nahihirapan na ngayon: ang ating kakayahang iugnay ang mga biyolohikal na penomena sa kumplikadong memorya ng pag-uugali ay nananatiling lubhang mahirap. Ang pagtagumpayan ang pagkakaibang ito ay marahil ang pinakamalaking hamon sa neurosciences.
Pagkilala
Ang gawaing ito ay sinusuportahan ng mga gawad mula sa National institute on Drug Abuse.
Mga napiling mga pagdadaglat at mga acronym
- Nac
- nucleus accumbens
- CREB
- cAMP response element na nagbubuklod na protina
- ΔFosB
- isang Fos family transcription factor
- VTA
- ventral tegmental area
- AMPA
- α-amino-3-hydroxy-5-methyl-4-isoxazolepropionic acid
- LTD
- pangmatagalang depresyon
- LTP
- pangmatagalang pagpoprotekta
- BDNF
- neurotrophic factor na nakuha ng utak
- NKkB
- nuclear factor kB
Mga sanggunian