COMMENTI: Questo studio fMRI coreano replica altri studi sul cervello per gli utenti di pornografia. Come gli studi dell'Università di Cambridge, ha trovato modelli di attivazione cerebrale indotta da indizi nei tossicodipendenti che rispecchiavano i modelli di tossicodipendenti. In linea con diversi studi tedeschi, ha trovato alterazioni nella corteccia prefrontale che corrispondono ai cambiamenti osservati nei tossicodipendenti.
Mentre replica aspetti di altri studi, questo documento coreano aggiunge anche quanto segue:
- Ha esaminato ulteriori regioni cerebrali coinvolte nella reattività indotta da stimoli e ha riscontrato che tutti hanno reagito con intensità molto maggiore rispetto ai controlli sani. Altre regioni del cervello: talamo, nucleo del caudato sinistro, circonvoluzione supramarginale destra e giro cingolato dorsale anteriore destro.
- La novità è che i risultati corrispondevano perfettamente ai modelli della corteccia prefrontale osservati nei tossicodipendenti: maggiore reattività dei segnali alle immagini sessuali, ma risposta inibita ad altri stimoli normali. In un tossicodipendente, i segnali relativi alla dipendenza provocano la corteccia prefrontale che fa saltare il circuito della ricompensa con segnali "vai a prenderlo". Si traduce anche in una minore eccitazione in risposta alle normali ricompense quotidiane. Cioè, meno motivazione a perseguire ricompense normali.
Davanti. Behav. Neurosci., 30 November 2015
COLLEGAMENTO A STUDIO COMPLETO
- Dipartimento di Psicologia, Brain Research Institute, Chungnam National University, Daejeon, Corea del sud
Gli studi sulle caratteristiche degli individui con disturbo ipersessuale si sono accumulati a causa delle crescenti preoccupazioni sul comportamento ipersessuale problematico (PHB). Attualmente, si sa relativamente poco sui meccanismi comportamentali e neurali sottostanti del desiderio sessuale. Il nostro studio mirava a indagare i correlati neurali del desiderio sessuale con la risonanza magnetica funzionale correlata agli eventi (fMRI). Ventitré individui con PHB e 22 controlli sani di pari età sono stati scansionati mentre osservavano passivamente stimoli sessuali e non sessuali. I livelli di desiderio sessuale dei soggetti sono stati valutati in risposta a ogni stimolo sessuale. Rispetto ai controlli, gli individui con PHB hanno sperimentato un desiderio sessuale più frequente e aumentato durante l'esposizione a stimoli sessuali. Una maggiore attivazione è stata osservata nel nucleo caudato, lobo parietale inferiore, giro cingolato anteriore dorsale, talamo e corteccia prefrontale dorsolaterale nel gruppo PHB rispetto al gruppo di controllo. Inoltre, i modelli emodinamici nelle aree attivate differivano tra i gruppi. Coerentemente con i risultati degli studi di imaging cerebrale sulla dipendenza da sostanze e comportamenti, gli individui con le caratteristiche comportamentali del PHB e il desiderio accresciuto hanno mostrato un'attivazione alterata nella corteccia prefrontale e nelle regioni sottocorticali. In conclusione, i nostri risultati aiuteranno a caratterizzare i comportamenti e i meccanismi neurali associati degli individui con PHB.
Introduzione
Il comportamento ipersessuale problematico (PHB) è definito come la partecipazione continua a ripetuti atti sessuali senza controllo sull'eccessiva compulsività e sul comportamento sessuale, nonostante la consapevolezza delle conseguenze negative associate ( Goodman, 1993 ; Carnes, 2001 , 2013 ). Chi soffre di PHB può incontrare notevoli difficoltà nelle relazioni familiari e nel rendimento lavorativo. Inoltre, è maggiormente a rischio di contrarre malattie sessualmente trasmissibili o di avere gravidanze indesiderate a seguito di rapporti sessuali promiscui ( Schneider e Schneider, 1991 ; Kuzma e Black, 2008 ). Negli Stati Uniti, il 3-6% della popolazione generale e degli studenti universitari presenta PHB ( Coleman, 1992 ; Black, 2000 ; Seegers, 2003 ). In Corea, circa il 2% di tutti gli studenti universitari presenta PHB ( Kim e Kwak, 2011 ). A causa della sua elevata prevalenza e dei problemi correlati, i rischi associati sono sempre più riconosciuti nella società, poiché l'incidenza dell'epatite B primaria sembra essere in aumento.
Sebbene la gravità del disturbo da ipersessualità sia ormai riconosciuta, non è stato incluso nel DSM-5 ( American Psychiatric Association, 2013 ). Sono in corso dibattiti sull'opportunità di classificare il disturbo da ipersessualità come una malattia; pertanto, non esiste un consenso sulla sua definizione, classificazione o criteri diagnostici. Ciò riflette le difficoltà nello stabilire uno standard di classificazione chiaro a causa della mancanza di studi oggettivi ed empirici sui fattori correlati al disturbo da ipersessualità.
Sebbene la classificazione del PHB come malattia sia ancora controversa, è stato proposto di classificarlo come una categoria di disturbi da dipendenza, poiché il PHB include sintomi simili ad altre forme di dipendenza ( Goodman, 2001 ; Kor et al., 2013 ). L'aumento del desiderio è fortemente correlato agli aspetti clinicamente rilevanti dei disturbi da dipendenza. Studi di imaging hanno dimostrato che la funzione delle regioni cerebrali coinvolte nel desiderio è alterata nei soggetti con dipendenza da sostanze ( Garavan et al., 2000 ; Tapert et al., 2003 ; Franklin et al., 2007 ; McClernon et al., 2009 ). Le dipendenze comportamentali, come il gioco d'azzardo, i videogiochi online e i comportamenti sessuali, che non implicano l'assunzione diretta di droghe, comportano anch'esse un desiderio accentuato che sembra essere correlato ad alterazioni funzionali in specifiche regioni cerebrali ( Crockford et al., 2005 ; Ko et al., 2009 ; Kühn e Gallinat, 2014 ; Voon et al., 2014 ).
Studi di neuroimaging sul desiderio nella dipendenza da sostanze e nelle dipendenze comportamentali hanno mostrato cambiamenti funzionali nella corteccia prefrontale (PFC) e nei circuiti di ricompensa sottocorticali nei soggetti affetti da questi disturbi ( Goldstein e Volkow, 2011 ). In particolare, questi studi hanno identificato il ruolo chiave della PFC nella dipendenza, sia attraverso la sua regolazione delle regioni limbiche della ricompensa, sia attraverso il suo coinvolgimento negli aspetti motivazionali dell'uso ripetitivo di sostanze e del comportamento compulsivo. Il funzionamento alterato della PFC porta a deficit nell'inibizione della risposta e nell'attribuzione di salienza, come l'attribuzione di una salienza eccessiva e inappropriata a uno stimolo che crea dipendenza, come nel caso delle sostanze e dei comportamenti di dipendenza, e a una diminuzione del desiderio per i normali stimoli gratificanti ( Goldman-Rakic e Leung, 2002 ; Goldstein e Volkow, 2011 ).
In linea con questi risultati, i risultati di uno studio di neuroimaging sui PHB hanno suggerito che gli individui con PHB hanno un desiderio sessuale soggettivo maggiore rispetto ai controlli sani e che il desiderio aumentato è associato a diversi modelli di risposte neurali nella rete funzionale cingolata anteriore dorsale-striato ventrale-amigdala ( Voon et al., 2014 ). In uno studio sulla struttura cerebrale e la connettività funzionale, Kühn e Gallinat (2014) hanno dimostrato che la frequente esposizione alla pornografia è associata ad alterazioni della struttura e del funzionamento cerebrale nelle aree della corteccia prefrontale e potrebbe portare a una tendenza a cercare materiale sessuale nuovo e più estremo.
Questi studi forniscono la prova che il desiderio elevato e le anormalità funzionali implicate nel desiderio sono anche coinvolte nel PHB, anche se il comportamento stesso non induce effetti neurotossici.
Purtroppo, i dati empirici sulle risposte neurali associate al desiderio sessuale in individui con PHB sono insufficienti. Studi precedenti sui meccanismi cerebrali alla base dell'elaborazione del desiderio sessuale in individui con PHB hanno utilizzato paradigmi a blocchi convenzionali durante la risonanza magnetica funzionale (fMRI) e un'esposizione relativamente prolungata a stimoli erotici. Negli studi sul desiderio sessuale, la durata della presentazione sembra essere importante da un punto di vista metodologico e a causa delle differenze nell'elaborazione delle informazioni ( Bühler et al., 2008 ). Nei disegni a blocchi, la durata della presentazione dello stimolo è prolungata e la presenza di stimoli continui in un blocco è completamente prevedibile ( Zarahn et al., 1997 ). Pertanto, i disegni a blocchi probabilmente attivano aree associate a processi cognitivi, come l'attenzione sostenuta, il controllo top-down e l'inibizione dell'eccitazione sessuale . Ciò potrebbe portare a un ridotto coinvolgimento emotivo e quindi modificare l'attività neurale sottostante ( Schafer et al., 2005 ). Dal punto di vista metodologico, i disegni sperimentali basati su eventi sono inferiori ai disegni sperimentali convenzionali a blocchi per l'individuazione delle aree cerebrali attivate, mentre sono superiori per la stima della funzione di risposta emodinamica ( Birn et al., 2002 ).
Pertanto, gli obiettivi di questo studio erano a
(1) replicano precedenti risultati comportamentali del desiderio sessuale accresciuto in individui con PHB,
(2) identificare i cambiamenti nella funzione cerebrale in regioni note per essere associate a un desiderio potenziato, e
(3) comprendere le differenze nelle risposte emodinamiche di quelle aree cerebrali nel tempo in individui con PHB utilizzando fMRI correlati agli eventi.
Abbiamo ipotizzato che gli individui con PHB hanno maggiori probabilità di mostrare un maggiore desiderio sessuale rispetto ai controlli sani e che le regioni del cervello, come il PFC e i circuiti di ricompensa subcorticale, mostrano attività alterate e risposte emodinamiche rispetto ai controlli sani.
Metodi
A chi e' rivolto
Il presente studio ha incluso 23 partecipanti maschi eterosessuali nel gruppo PHB [età media = 26.12, deviazione standard (DS) = 4.11 anni] e 22 partecipanti maschi eterosessuali nel gruppo di controllo (età media = 26.27, DS = 3.39 anni) . Circa 70 potenziali partecipanti sono stati reclutati da strutture di trattamento per comportamenti sessuali problematici e riunioni di Sex Addiction Anonymous . I criteri di inclusione erano basati sui criteri diagnostici PHB di studi precedenti (Tabella S1; Carnes et al., 2010 ; Kafka, 2010 ). I criteri di esclusione erano i seguenti: età superiore a 45 o inferiore a 18 anni; un grave disturbo psichiatrico, come disturbo da uso di alcol, disturbo da gioco d'azzardo, disturbo depressivo maggiore, disturbo bipolare o disturbo ossessivo-compulsivo; assunzione di farmaci; storia di grave trauma cranico; omosessualità; precedenti penali; o inidoneità all'imaging (ad esempio, presenza di metallo nel corpo, astigmatismo grave o claustrofobia). I medici hanno condotto colloqui clinici con tutti i potenziali soggetti e un gruppo finale di 23 uomini che soddisfacevano i criteri di inclusione e non quelli di esclusione è stato selezionato per il gruppo PHB. Per il gruppo di controllo, sono stati selezionati 22 partecipanti con caratteristiche demografiche (età, sesso, livello di istruzione e livello di reddito) corrispondenti a quelle del gruppo PHB. Tutti i partecipanti hanno fornito il consenso informato scritto dopo che il contenuto del presente studio è stato loro spiegato. Il Comitato Etico dell'Università Nazionale di Chungnam ha approvato le procedure sperimentali e di consenso (numero di approvazione: 201309-SB-003-01). Tutti i partecipanti hanno ricevuto un compenso finanziario (150 dollari) per la loro partecipazione.
I partecipanti hanno compilato un questionario contenente domande sulle loro caratteristiche demografiche e sulle attività sessuali degli ultimi 6 mesi, nonché scale standardizzate, come la Barratt Impulsiveness Scale-11 ( Patton et al., 1995 ), il questionario sull'aggressività di Buss-Perry ( Buss e Perry, 1992 ), il Beck Depression Inventory ( Beck et al., 1996 ), il Beck Anxiety Inventory ( Beck et al., 1996 ), il Sexual Addiction Screening Test-R (SAST-R; Carnes et al., 2010 ) e l'Hypersexual Behavior Inventory (HBI; Reid et al., 2011 ; Tabella 1 ). Le domande sul comportamento sessuale riguardavano l'età del primo rapporto sessuale e lo stato attuale della relazione sessuale. Una situazione sessuale esclusiva è stata definita come una relazione in cui solo due individui intrattengono rapporti sessuali esclusivamente tra loro. Una relazione sessuale non esclusiva è stata definita come il mantenimento di molteplici relazioni sessuali con diversi partner sessuali senza tuttavia instaurare alcun tipo di intimità all'interno di ciascuna relazione.
TABELLA 1
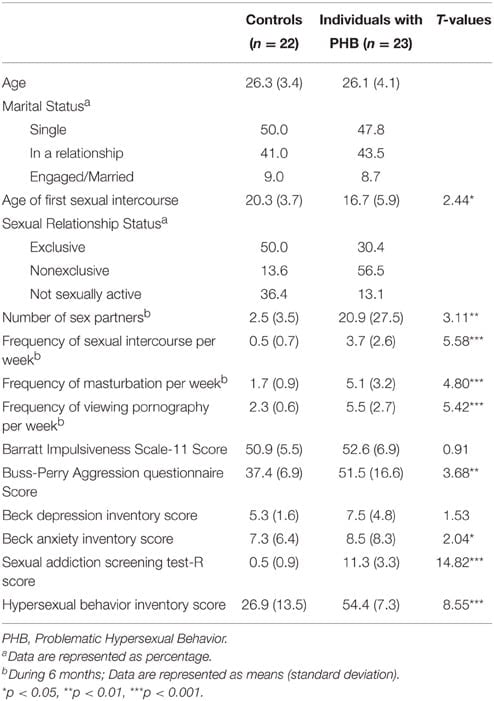
Tabella 1. Caratteristiche dei soggetti.
Le domande sulle caratteristiche legate all'attività sessuale includevano la frequenza dei rapporti sessuali settimanali, la frequenza della masturbazione settimanale, la frequenza della visione di materiale pornografico settimanale e il numero totale di partner sessuali negli ultimi 6 mesi . Inoltre, sono stati utilizzati il SAST-R ( Carnes et al., 2010 ) e l'HBI ( Reid et al., 2011 ) per valutare il grado di dipendenza sessuale ipersessuale nei partecipanti. Il SAST-R è composto da 20 domande progettate per valutare il grado di dipendenza sessuale. Il punteggio varia da 0 a 20 punti, con punteggi più alti che indicano una dipendenza sessuale più grave. L'HBI è composto da 19 domande e il punteggio varia da 19 a 95. Un punteggio totale pari o superiore a 53 è indicativo di un disturbo ipersessuale . La coerenza interna (coefficiente alfa di Cronbach) del SAST-R e dell'HBI è rispettivamente di 0.91 e 0.96 ( Carnes et al., 2010 ; Reid et al., 2011 ).
Stimoli sperimentali e paradigma sperimentale
Uno studio preliminare è stato condotto su 130 uomini con funzioni sessuali normali che non hanno partecipato all'esperimento fMRI, al fine di selezionare gli stimoli sessuali e non sessuali per lo studio fMRI (File S1). Gli stimoli visivi consistevano in 20 foto raccolte dall'International Affective Picture System (6 foto; Lang et al., 2008 ) e da siti web (14 foto). Gli stimoli sessuali consistevano in fotografie raffiguranti donne nude e attività sessuali. Inoltre, sono state scelte 20 foto che non inducevano alcun desiderio sessuale come stimoli non sessuali. Queste sono state abbinate agli stimoli sessuali in base al loro livello di piacevolezza. Gli stimoli non sessuali mostravano scene altamente eccitanti, come attività di sport acquatici, la celebrazione di una vittoria e lo sci. Questi stimoli sono stati scelti per identificare l'attività cerebrale correlata esclusivamente al desiderio sessuale, escludendo l'attività derivante da sensazioni di piacevolezza e di eccitazione generale.
Per il paradigma sperimentale fMRI, all'inizio dell'esperimento sono state fornite brevi istruzioni sull'esperimento per 6 secondi, seguite dalla presentazione casuale di stimoli sessuali o non sessuali per 5 secondi ciascuno . Ogni intervallo tra gli stimoli era di 7-13 secondi (in media 10 secondi) per aiutare il partecipante a tornare al suo stato di base. Per mantenere i partecipanti concentrati sugli stimoli, è stato chiesto loro di premere il pulsante di risposta quando veniva presentato un target inatteso per circa 500 ms, per un totale di 12 volte durante qualsiasi intervallo. Il tempo totale richiesto per l'esperimento è stato di 8 minuti e 48 secondi (Figura 1 ).
FIGURA 1
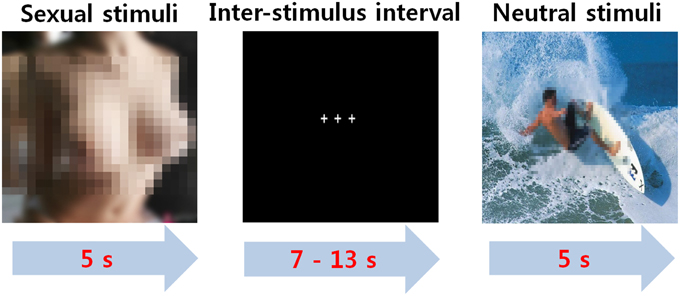
Figura 1. Il paradigma evento-correlato per il desiderio sessuale.
Dopo aver completato l'esperimento fMRI, i partecipanti hanno visualizzato gli stessi stimoli presentati durante l'esperimento fMRI e hanno dovuto rispondere alle seguenti tre domande per una valutazione psicologica.
In primo luogo, è stato loro chiesto di rispondere "sì" o "no" quando gli è stato chiesto se sentissero il desiderio sessuale quando visualizzarono ogni stimolo.
In secondo luogo, dovevano valutare il loro desiderio sessuale su una scala Likert a cinque punti che andava da 1 (il meno intenso) a 5 (il più intenso).
In terzo luogo, le valutazioni soggettive dei partecipanti sulle dimensioni della valenza e dell'eccitazione a ciascuno stimolo sono state determinate secondo una scala Likert a sette punti.
Le valutazioni sono state formulate su due dimensioni. Valence, che era positivo o negativo, variava da molto negativo a 1 a molto positivo a 7, e l'eccitazione emotiva variava da calma a 1 a eccitata / suscitata a 7. Infine, ai partecipanti è stato richiesto di segnalare qualsiasi altra emozione che hanno sperimentato oltre al desiderio sessuale durante la loro esposizione a ciascun stimolo.
Acquisizione Immagine
L'acquisizione delle immagini è stata effettuata con uno scanner di risonanza magnetica Philips da 3.0 T (Philips Healthcare, Best, Paesi Bassi). È stato utilizzato un metodo di scansione fMRI a singolo impulso con imaging eco-planare [variabili di imaging: tempo di ripetizione (TR) = 2,000 ms, tempo di eco (TE) = 28 ms, spessore della fetta = 5 mm senza intervallo, matrice = 64 × 64, campo visivo (FOV) = 24 × 24 cm, angolo di flip = 80° e risoluzione sul piano = 3.75 mm] per acquisire 35 fette continue di immagini dipendenti dal livello di ossigenazione del sangue (BOLD). Le immagini anatomiche pesate in T1 sono state ottenute con una sequenza di recupero dell'inversione con attenuazione del fluido tridimensionale ( TR = 280, TE = 14 ms, angolo di flip = 60°, FOV = 24 × 24 cm, matrice = 256 × 256 e spessore della fetta = 4 mm).
Analisi statistiche
Al fine di indagare le risposte comportamentali e neurali basate esclusivamente sul desiderio sessuale, i dati di imaging e psicologici relativi alle tre immagini che inducevano emozioni diverse dall'eccitazione sessuale, come disgusto, rabbia o sorpresa, sono stati esclusi dall'analisi dei dati. Sono stati eseguiti test t indipendenti sulle frequenze e intensità del desiderio sessuale tra i due gruppi utilizzando SPSS 22 (IBM Corporation, Armonk, NY, USA). La frequenza del desiderio sessuale è stata considerata come il numero di stimoli per i quali ciascun partecipante ha sperimentato desiderio sessuale, su un totale di 20 stimoli sessuali, mentre l'intensità dell'eccitazione sessuale è stata calcolata come il livello medio di desiderio sessuale soggettivo per le 20 immagini erotiche.
SPM8 (Wellcome Department of Imaging Neuroscience, Londra, Regno Unito) è stato utilizzato per analizzare i dati fMRI. Nella fase di pre-elaborazione, l'acquisizione dell'immagine MRI è stata eseguita nell'ordine seguente: correzione della fasatura per acquisizione interleaved, correzione del movimento e normalizzazione spaziale su un modello standard fornito dal Montreal Neurological Institute (MNI). Successivamente, le immagini normalizzate sono state livellate con un kernel gaussiano 8-mm.
Dopo aver completato la preelaborazione, sono state create matrici di progettazione con due condizioni (condizione sessuale e condizione non sessuale) per ciascun partecipante al fine di identificare le aree con attivazione correlata al desiderio sessuale. Analisi individuali di primo livello dei confronti tra condizione sessuale e condizione non sessuale sono state utilizzate per un'analisi a effetti casuali e sono state create immagini medie per ciascun soggetto. Test t a campione singolo sulle immagini medie sono stati utilizzati per valutare gli effetti di gruppo significativi in ciascun gruppo nelle immagini di contrasto create nelle analisi individuali. Test t a due campioni sono stati condotti per identificare le differenze tra i due gruppi per le risposte cerebrali nella condizione sessuale rispetto alla condizione non sessuale. Inoltre, analisi di correlazione sono state condotte solo nel gruppo PHB per determinare le regioni di attivazione che correlavano con la gravità dell'ipersessualità secondo il SAST-R. Poiché la varianza dei punteggi del questionario potrebbe essere stata troppo bassa per rivelare correlazioni più significative nel gruppo di controllo, le analisi di correlazione non sono state condotte in questo gruppo. I valori P inferiori a 0.05 (False Discovery Rate, corretto, dimensione del cluster ≥ 20) o 0.001 (non corretto, dimensione del cluster ≥ 20) sono stati considerati significativi per l'attività cerebrale, poiché questi livelli sono generalmente accettati negli studi fMRI. Tutte le coordinate dei voxel attivati sono mostrate come coordinate MNI nelle Tabelle 3 e 4.
La variazione percentuale del segnale è stata estratta dalle Regioni di Interesse (ROI) in base ai risultati delle analisi tra gruppi e di correlazione [ovvero, talamo bilaterale, corteccia prefrontale dorsolaterale destra (DLPFC), nucleo caudato sinistro, giro sopramarginale destro e giro cingolato anteriore dorsale destro] con MarsBaR ( http://www.sourceforge.net/projects/marsbar ). Le ROI sono state create posizionando una sfera di 5 mm attorno alle coordinate riportate nelle Tabelle 3 e 4. Al fine di esaminare le caratteristiche temporali delle risposte emodinamiche, è stato estratto anche l'andamento temporale del segnale BOLD dalle ROI durante la presentazione di ogni stimolo sessuale ( per un totale di 12 s; 5 s e 7 s successivamente) per tutti i partecipanti . Gli andamenti temporali sono stati quindi mediati tra i partecipanti di ciascun gruppo.
Come test di follow-up della correlazione per calcolare il coefficiente di correlazione, le relazioni tra i punteggi su SAST-R e HBI e le variazioni percentuali del segnale nelle ROI basate sui risultati dell'analisi di correlazione (Tabella 4 ) sono state analizzate nel gruppo PHB con SPSS 22.
Risultati
Risultati delle valutazioni psicologiche
Dei soggetti di controllo sani 20, solo due hanno riferito altre emozioni oltre all'eccitazione sessuale in risposta ai tre stimoli sessuali. Un partecipante al gruppo di controllo ha riferito che due stimoli sessuali tra gli stimoli sessuali 20 hanno indotto disgusto e rabbia, mentre l'altro partecipante al gruppo di controllo ha valutato che una foto sessuale induceva sorpresa. Le tre immagini sessuali che hanno indotto sentimenti diversi dall'eccitazione sessuale sono state escluse dall'analisi dei dati.
Un indipendente t-Test non ha indicato differenze di gruppo nelle dimensioni della valenza e dell'eccitazione in risposta a stimoli sessuali [valenza: t(43) = 0.14, p> 0.05, di Cohen d = 0.042; eccitazione: t(43) = 0.30,p> 0.05, di Cohen d = 0.089]. Inoltre, la percentuale di stimoli sessuali tra le immagini erotiche di 20 che evocavano il desiderio sessualeHowed che il gruppo di PHB sentito più spesso il desiderio sessuale rispetto al gruppo di controllo durante l'esposizione a stimolo sessualeio [t(43) = 3.23, p <0.01, di Cohen d = 0.960]. TL'intensità dell'eccitazione sessuale ha mostrato che il gruppo di PHB ha avuto un eccitamento sessuale più intenso rispetto al gruppo di controllo in risposta a foto sessualmente stimolanti [t(43) = 14.3, p <0.001, di Cohen d = 4.26]. I risultati delle valutazioni psicologiche sono riportati in Tabella 2.
TABELLA 2
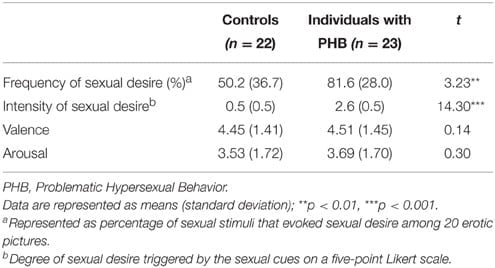
Tabella 2. Risultati della valutazione psicologica.
Risultati fMRI
Nel gruppo PHB, è stata osservata un'attivazione nei giri frontali medi/inferiori bilaterali [area di Brodmann (BA) 9], cuneo/precuneo (BA 7, 18 e 19), striato, talamo e giri del cingolo (BA 24 e 32) in risposta a stimoli sessuali rispetto a stimoli non sessuali. Nel gruppo di controllo, è stata riscontrata un'attivazione nei giri frontali medi/inferiori bilaterali (BA 9), cuneo/precuneo (BA 7, 18 e 19), striato, talamo e giro del cingolo sinistro (BA 24) (tasso di falsa scoperta corretto, p < 0.05).
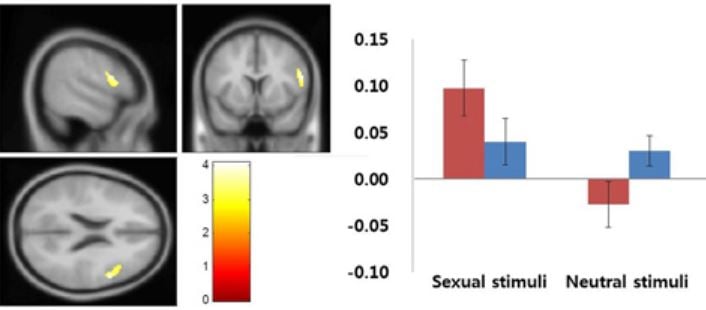
Nell'analisi tra gruppi, il gruppo PHB ha mostrato una maggiore attivazione nella corteccia cingolata anteriore dorsale destra (dACC; BA 24 e 32), nei talami bilaterali, nel nucleo caudato sinistro, nella DLPFC destra (BA 9, 46) e nel giro sopramarginale destro (BA 40) rispetto all'attivazione nel gruppo di controllo durante l'esposizione a stimoli sessuali rispetto a stimoli non sessuali. Nessuna regione cerebrale nel gruppo di controllo ha mostrato una maggiore attivazione rispetto al gruppo PHB . Tutte le coordinate per i voxel attivati sono mostrate come coordinate MNI nelle Tabelle 3 e 4 . La Figura 2 mostra le variazioni percentuali del segnale nei gruppi di controllo e PHB in ciascuna condizione sperimentale (ovvero, condizioni sessuali e non sessuali) per le ROI selezionate, e la Figura 3 mostra la serie temporale media per ciascun gruppo delle variazioni percentuali del segnale in ogni punto temporale nelle ROI durante la presentazione di ogni stimolo sessuale (per un totale di 12 s; 5 e 7 s successivamente) in base ai risultati dell'analisi tra gruppi.
TABELLA 3
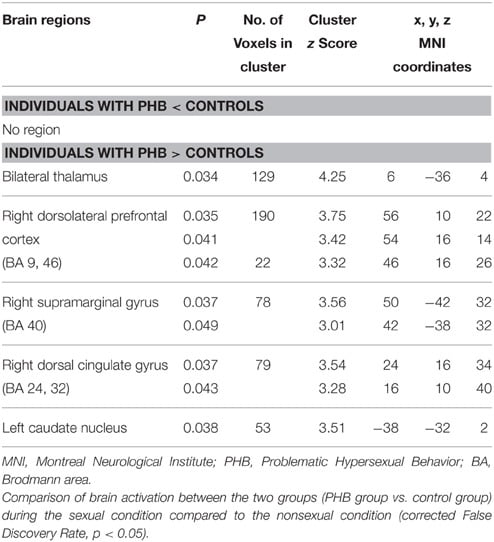
Tabella 3. Regioni cerebrali identificate dall'analisi di gruppo.
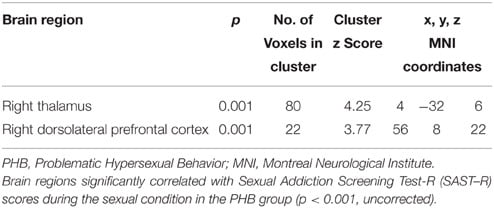
Tabella 4. Regioni cerebrali identificate nell'analisi di correlazione nel gruppo PHB durante l'esposizione a stimoli sessuali.
FIGURA 2
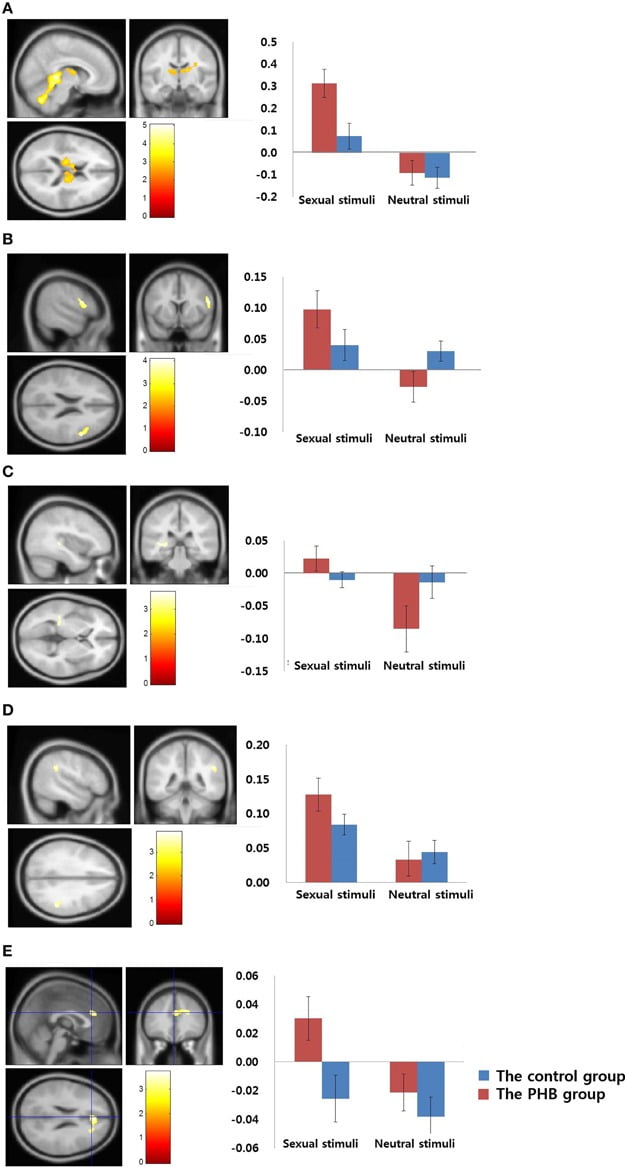
Figura 2. Risultati dell'analisi tra i gruppi. (A) Talamus bilaterale (coordinata MNI; x = 6, y = -36, z 4 =) (B) Destra corteccia prefrontale dorsolaterale (coordinata MNI;x = 56, y = 10, z 22 =) (C) Nucleo caudato sinistro (coordinata MNI; x = -38, y = -32, z 2 =)(D) Giusto giro supramarginale (coordinata MNI; x = 50, y = -42, z 32 =) (E) Destro cingolato anteriore dorsale destro (coordinata MNI; x = 24, y = -16, z = 34). Risultati dei confronti dell'attivazione negli stimoli sessuali meno gli stimoli non sessuali tra PHB e gruppi di controllo (p <0.05, False Discovery Rate, corretto). Il gruppo di controllo e il gruppo PHB sono rappresentati rispettivamente come blu e rosso. L'asse y mostra la variazione del segnale percentuale e le barre di errore rappresentano l'errore standard della media.
FIGURA 3
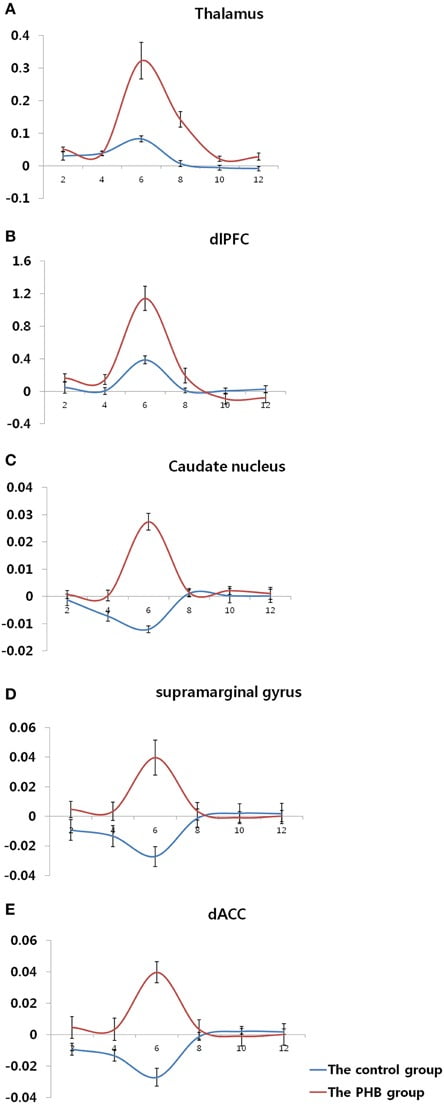
Figura 3. Decorso temporale delle risposte emodinamiche in ciascuna regione di interesse.(A) Talamus bilaterale (coordinata MNI; x = 6, y = -36, z 4 =) (B) Destra corteccia prefrontale dorsolaterale (coordinata MNI; x = 56, y = 10, z 22 =) (C) Nucleo caudato sinistro (coordinata MNI; x = -38, y = -32, z 2 =) (D) Giusto giro supramarginale (coordinata MNI; x = 50, y = -42, z 32 =) (E) Destro cingolato anteriore dorsale destro (coordinata MNI; x = 24, y = -16, z = 34). L'asse y e l'asse x visualizzano rispettivamente la variazione del segnale percentuale e il tempo (s), e le barre di errore rappresentano l'errore standard della media.
L'analisi di correlazione delle regioni che erano correlate al punteggio SAST-R ha dimostrato che il talamo giusto e il DLPFC (BA 9) erano correlati con i punteggi SAST-R (p <0.001, non corretto) nel gruppo PHB durante l'esposizione a stimoli sessuali, come mostrato in Tabella 4. TI risultati dell'analisi di follow-up hanno mostrato che la variazione del segnale percentuale che è stata estratta dal talamo destro e dalla DLPFC correlata in modo significativo con la gravità dell'ipersessualità, come mostrato nella figura 4. Le variazioni del segnale percentuale nel talamo destro e nella DLPFC destra sono correlate positivamente con i punteggi SAST-R nel gruppo PHB durante l'esposizione a stimoli sessuali (talamo destro: r = 0.74, n = 23, p <0.01; DLPFC destro: r = 0.63, n = 23, p <0.01). Inoltre, le variazioni percentuali del segnale nel DLPFC destro e nel talamo destro erano positivamente correlate ai punteggi HBI nel gruppo PHB (talamo destro: r = 0.65, n = 23, p <0.01; DLPFC destro: r = 0.53, n = 23, p <0.01), come mostrato in Figura 4.
FIGURA 4
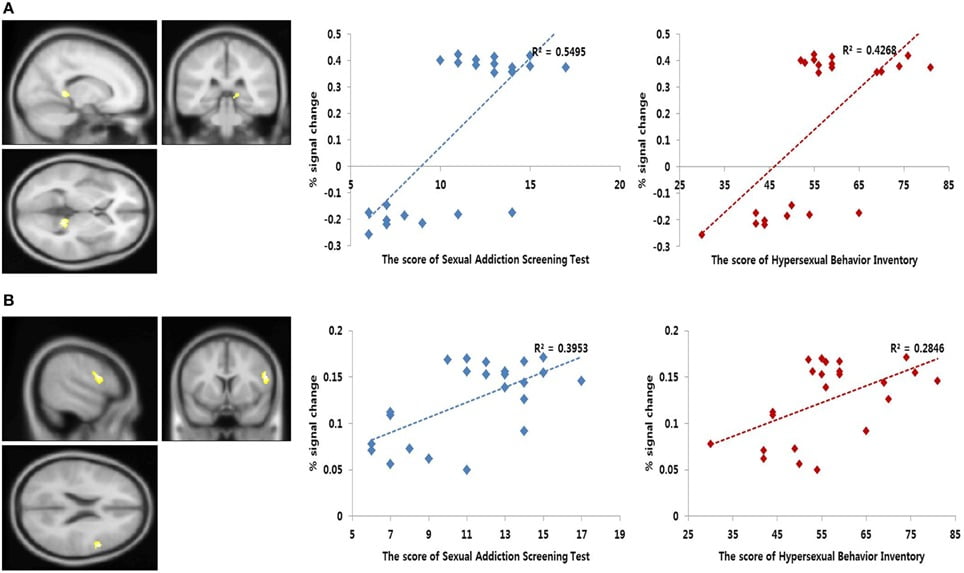
Figura 4. Risultati dell'analisi di correlazione . A sinistra, analisi di correlazione della risonanza magnetica funzionale (fMRI). Le regioni che mostrano una correlazione significativa tra l'attività cerebrale durante il desiderio sessuale e i punteggi del Sexual Addiction Screening Test-R (SAST-R) ( p < 0.001, non corretto). A destra, relazione lineare tra le variazioni percentuali del segnale estratte da ciascuna area e i punteggi di gravità sessuale [ovvero, punteggi SAST-R e Hypersexual Behavior Inventory (HBI)]. L'asse x mostra i punteggi di gravità sessuale e l'asse y rappresenta la variazione percentuale del segnale. (A) Talamo bilaterale (coordinate MNI; x = 4, y = −32, z = 6) (B) Corteccia prefrontale dorsolaterale destra (coordinate MNI; x = 56, y = 8, z = 22).
Discussione
Il presente studio ha esaminato se esistesse una differenza nei livelli di desiderio sessuale tra individui con PHB e controlli sani e, in caso affermativo, se tale differenza fosse correlata ad alterazioni funzionali nei substrati neurali del desiderio sessuale in questi individui. Come previsto, il gruppo PHB ha mostrato livelli significativamente più elevati di desiderio sessuale e un'attivazione alterata nella corteccia prefrontale e nelle aree sottocorticali rispetto ai controlli. Questi risultati suggeriscono che i cambiamenti funzionali nei circuiti neurali che mediano il desiderio di comportamento sessuale indotto da stimoli erano simili a quelli in risposta alla presentazione di stimoli in individui con dipendenza da sostanze o dipendenza comportamentale ( Garavan et al., 2000 ; Tapert et al., 2003 ; Crockford et al., 2005 ; Franklin et al., 2007 ; Ko et al., 2009 ; McClernon et al., 2009 ). Voon et al. (2014) hanno riportato un desiderio anomalo e cambiamenti funzionali nelle regioni associate a un desiderio elevato in individui con comportamento sessuale compulsivo. Abbiamo replicato e ampliato questi risultati studiando le serie temporali dell'attivazione durante i 12 secondi totali nelle aree associate al desiderio sessuale.
Come ipotizzato, le analisi dei risultati delle valutazioni psicologiche hanno mostrato che il gruppo PHB ha manifestato un desiderio sessuale più frequente rispetto al gruppo di controllo durante l'esposizione a stimoli sessuali, suggerendo che questo gruppo avesse una soglia più bassa per il desiderio sessuale . Quando veniva indotto il desiderio sessuale, il gruppo PHB mostrava un'intensità maggiore rispetto al gruppo di controllo. Questo risultato è coerente con precedenti studi su individui con PHB ( Laier et al., 2013 ; Laier e Brand, 2014 ; Voon et al., 2014 ), dimostrando in particolare che il desiderio di pornografia potrebbe svolgere un ruolo chiave nella dipendenza da cybersex.
I risultati sulle risposte cerebrali agli stimoli sessuali si integrano perfettamente con i precedenti risultati di neuroimaging che indicavano che l'attività viene osservata nelle regioni cerebrali coinvolte nel desiderio sessuale o nella motivazione/anticipazione, così come nel piacere sessuale o nell'eccitazione/consumazione, quando tutti i partecipanti sono esposti a stimoli sessuali ( Georgiadis e Kringelbach, 2012 ). I risultati dei confronti di gruppo dell'imaging cerebrale hanno rivelato un'attivazione alterata nella DLPFC destra (BA 9) e nelle regioni sottocorticali, tra cui la dACC destra (BA 24 e 32), il nucleo caudato sinistro, il giro sopramarginale destro (BA 40) e il talamo destro, e queste alterazioni potrebbero essere associate alle caratteristiche comportamentali del gruppo PHB. Oltre all'attivazione cerebrale, abbiamo esaminato una serie temporale delle risposte emodinamiche in queste aree durante e dopo l'eccitazione del desiderio sessuale in queste aree.
Tra queste regioni, si ritiene che il nucleo caudato sinistro e la corteccia cingolata anteriore destra (BA 24 e 32) e la corteccia prefrontale dorsolaterale destra siano associati alla componente motivazionale del desiderio sessuale. Il coinvolgimento del nucleo caudato nell'elaborazione della motivazione e della ricompensa potrebbe spiegare la sua risposta agli stimoli sessuali ( Delgado, 2007 ). Lo striato dorsale si attiva durante l'anticipazione della ricompensa ( Delgado, 2007 ), il che potrebbe riflettere il desiderio associato a tale anticipazione. In uno studio sulle risposte neurali associate al consumo di pornografia, la frequente attivazione derivante dall'esposizione alla pornografia potrebbe portare all'esaurimento e alla downregulation dello striato, incluso il nucleo caudato, nei soggetti di controllo sani ( Kühn e Gallinat, 2014 ). Tuttavia, nel presente studio, è stata osservata una maggiore attivazione nel nucleo caudato nel gruppo PHB, nonostante il gruppo PHB guardasse pornografia più frequentemente . Queste differenze tra i risultati del presente studio e quelli di Kühn e Gallinat (2014) potrebbero essere spiegate dalla differenza nei partecipanti. Ovvero, a differenza dell'utilizzo di uomini adulti sani nello studio precedente, il nostro studio è stato condotto su individui con PHB. Prove crescenti suggeriscono che il nucleo caudato sia importante per l'apprendimento di abitudini stimolo-risposta e per il mantenimento del comportamento di dipendenza ( Vanderschuren e Everitt, 2005 ). L'attivazione del nucleo caudato in questo studio potrebbe suggerire che la reattività agli stimoli sessuali si stabilisca dopo ripetute esposizioni all'esperienza sessuale.
Il DACC è noto per essere correlato ai meccanismi motivazionali del desiderio sessuale (Redouté et al., 2000; Arnow et al., 2002; Hamann et al., 2004; Ferretti et al., 2005; Ponseti et al., 2006; Paul et al., 2008). Le nostre scoperte sull'attivazione del DACC suggeriscono che ha un ruolo nel desiderio sessuale, e questi risultati erano simili a quelli di uno studio sull'attività neurale legata al desiderio in soggetti con comportamenti sessuali compulsivi (Voon et al., 2014). Inoltre, il DACC è noto per essere importante nell'elaborazione iniziale del comportamento orientato agli obiettivi impegnandosi nel monitoraggio dei conflitti tra l'esigenza di espressione comportamentale e la soppressione di tale impulso (Devinsky et al., 1995; Arnow et al., 2002;Karama et al., 2002; Moulier et al., 2006; Safron et al., 2007). Neuroanatomicamente, il dACC proietta sul DLPFC e sul lobo parietale (Devinsky et al., 1995; Pizzagalli et al., 2001). In questo studio, l'attivazione nel dACC nel gruppo PHB potrebbe riflettere un conflitto interno tra l'impulso di esprimere impulsi sessuali come azioni e l'impulso a sopprimere gli impulsi dovuti a fattori situazionali durante la presentazione di stimoli sessuali.
L'attivazione del giro sopramarginale è associata a una maggiore attenzione verso stimoli percepiti come segnali sessuali ( Redouté et al., 2000 ; Stoléru et al., 2012 ). Studi precedenti hanno suggerito che la maggiore attenzione agli stimoli sessuali gioca un ruolo importante nel mantenimento del desiderio sessuale ( Barlow, 1986 ; Janssen e Everaerd, 1993 ) ed è correlata alla ricerca di sensazioni sessuali ( Kagerer et al., 2014 ). Nel presente studio, l'attivazione sopramarginale potrebbe riflettere la maggiore attenzione prestata dai soggetti PHB agli stimoli sessuali e che potrebbe risultare in livelli più elevati di desiderio sessuale rispetto al gruppo di controllo.
Tra le regioni che sono risultate significativamente attivate nei risultati tra i gruppi, la DLPFC e il talamo sono risultati direttamente correlati alla gravità della dipendenza sessuale nei soggetti PHB. Abbiamo osservato una maggiore attivazione del talamo, in linea con i risultati di studi precedenti sull'eccitazione sessuale ( Redouté et al., 2000 ; Moulier et al., 2006 ). Secondo studi precedenti sul desiderio sessuale, l'attivazione del talamo è correlata alle risposte fisiologiche (ovvero, la predisposizione all'attività sessuale) indotte dal desiderio sessuale ed è positivamente correlata all'erezione del pene ( MacLean e Ploog, 1962 ; Redouté et al., 2000 ; Moulier et al., 2006 ). È interessante notare che abbiamo anche riscontrato un pattern emodinamico più elevato e più ampio nel talamo rispetto a quello dei controlli. Questa risposta emodinamica più elevata e più ampia potrebbe indicare che l'eccitazione sessuale era più forte e prolungata negli individui con PHB.
Analogamente ai risultati di studi sull'attività neurale in individui con dipendenza durante il desiderio indotto da stimoli, abbiamo riscontrato un'alterazione della funzione della corteccia prefrontale (PFC) nel gruppo PHB. La PFC svolge un ruolo critico nella pianificazione futura e nella memoria di lavoro ( Bonson et al., 2002 ). Dal punto di vista neuroanatomico, la PFC è interconnessa a diverse aree, tra cui la corteccia cingolata anteriore dorsale (dACC), il nucleo caudato e il lobo parietale ( Devinsky et al., 1995 ; Pizzagalli et al., 2001 ; Goldman-Rakic e Leung, 2002 ). Precedenti studi sulla dipendenza hanno dimostrato che la disfunzione di questa rete, inclusa la corteccia prefrontale (PFC), è correlata alla regolazione da parte della PFC delle regioni limbiche della ricompensa e al suo coinvolgimento nelle funzioni esecutive di ordine superiore, tra cui l'autocontrollo, l'attribuzione di salienza e la consapevolezza ( Goldman-Rakic e Leung, 2002 ; Feil et al., 2010 ; Goldstein e Volkow, 2011 ; Kühn e Gallinat, 2014 ). In particolare, questi studi hanno identificato la funzione alterata della corteccia prefrontale dorsolaterale (DLPFC) come un'alterazione nell'attribuzione di salienza, che si traduce in sintomi come l'eccessiva sensibilità a uno stimolo di dipendenza, come nei comportamenti di dipendenza da sostanze, e la diminuzione dell'interesse per stimoli normalmente gratificanti ( Goldman-Rakic e Leung, 2002 ; Goldstein e Volkow, 2011 ). Nel presente studio, l'osservazione di una maggiore attivazione della DLPFC nel gruppo PHB rispetto al gruppo di controllo potrebbe riflettere un'eccessiva attribuzione di salienza agli stimoli sessuali.
In sintesi, il gruppo PHB ha mostrato un maggiore desiderio sessuale associato ad un'alterata attività cerebrale. Questi risultati indicano che il gruppo PHB potrebbe prestare eccessiva attenzione agli stimoli sessuali e che potrebbe avere una risposta automatica poiché la risposta condizionata agli stimoli sessuali non potrebbe essere mediata correttamente. I limiti del presente studio sono i seguenti. In primo luogo, l'etnia dei soggetti era asiatica. In secondo luogo, questo studio ha coinvolto solo soggetti maschi eterosessuali e studi futuri che includano donne e soggetti maschi omosessuali potrebbero essere utili per una migliore comprensione del PHB. I soggetti PHB con disturbi mentali concomitanti non sono stati inclusi nel presente studio, garantendo così che l'indagine sulla disfunzione neurale si basasse esclusivamente sul PHB. Tuttavia, secondo uno studio di Weiss (2004) , il 28% dei maschi con PHB soffre di disturbo depressivo maggiore. Considerando questi fattori, la generalizzabilità dei risultati dello studio alla popolazione generale è limitata. Infine, i due gruppi potrebbero aver differito per quanto riguarda l'autoconsapevolezza e/o la sensibilità emotiva a causa del trattamento dei partecipanti con PHB. Abbiamo cercato di ridurre le differenze tra il gruppo di controllo e il gruppo PHB abbinandoli per importanti variabili demografiche, tra cui età, livello di istruzione e lateralità, a scopo di confronto e applicando rigorosi criteri di esclusione, come la presenza di disturbi psichiatrici e l'uso attuale di farmaci psicotropi, a entrambi i gruppi. Successivamente, prevediamo di esaminare come le variabili relative al periodo o al tipo di trattamento influenzino le risposte emotive, comprese le risposte agli stimoli sessuali, degli individui con PHB.
Nonostante questi limiti, i risultati di questo studio contribuiscono in modo significativo alla letteratura e hanno implicazioni significative per la ricerca futura. Abbiamo identificato regioni cerebrali specifiche che erano direttamente associate al desiderio sessuale e ai cambiamenti temporali nelle attività di queste regioni tra soggetti con PHB. Come gli studi di imaging cerebrale sulla dipendenza da sostanze e comportamenti, la PHB era correlata a cambiamenti funzionali nella PFC e nelle aree sottocorticali, anche senza la neurotossicità dei farmaci. I nostri risultati sono quindi utili per caratterizzare i comportamenti e i meccanismi neurali associati degli individui con PHB e andare oltre le descrizioni delle caratteristiche come negli studi precedenti.
Finanziamento
Questo lavoro è stato supportato dal Korea Basic Science Institute (n. E35600) e dal fondo di ricerca della 2014 Chungnam National University.
Dichiarazione di conflitto di interessi
Gli autori dichiarano che la ricerca è stata condotta in assenza di relazioni commerciali o finanziarie che potrebbero essere interpretate come un potenziale conflitto di interessi.
Ringraziamenti
Gli autori desiderano ringraziare il Korea Basic Science Institute per aver permesso che questo studio venga condotto presso il Department of Human Imaging Center utilizzando lo scanner 3T MRI (Phillips).
Materiale supplementare
Il materiale supplementare relativo a questo articolo è disponibile online all'indirizzo: http://journal.frontiersin.org/article/10.3389/fnbeh.2015.00321
Referenze
American Psychiatric Association (2013). Manuale diagnostico e statistico dei disturbi mentali, 5a edizione . Arlington, VA: American Psychiatric Publishing.
Arnow, BA, Desmond, JE, Banner, LL, Glover, GH, Solomon, A., Polan, ML, et al. (2002). Attivazione cerebrale ed eccitazione sessuale in maschi eterosessuali sani. Brain 125, 1014–1023. doi: 10.1093/brain/awf108
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Barlow, DH (1986). Cause della disfunzione sessuale: il ruolo dell'ansia e dell'interferenza cognitiva. J. Consult. Clin. Psychol . 54, 140–148. doi: 10.1037/0022-006X.54.2.140
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Beck, AT, Steer, RA e Brown, GK (1996). Beck Depression Inventory-II . San Antonio, TX: Psychological Corporation.
Birn, RM, Cox, RW e Bandettini, PA (2002). Rilevamento contro stima nella fMRI evento-correlata: scelta della tempistica ottimale dello stimolo. Neuroimage 15, 252–264. doi: 10.1006/nimg.2001.0964
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Black, DW (2000). L'epidemiologia e la fenomenologia del comportamento sessuale compulsivo. CNS Spectr. 5, 26–72. doi: 10.1017/S1092852900012645
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Bonson, KR, Grant, SJ, Contoreggi, CS, Links, JM, Metcalfe, J., Weyl, HL, et al. (2002). Sistemi neurali e desiderio di cocaina indotto da stimoli. Neuropsychopharmacology 26, 376–386. doi: 10.1016/S0893-133X(01)00371-2
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Bühler, M., Vollstädt-Klein, S., Klemen, J., e Smolka, MN (2008). Il design della presentazione dello stimolo erotico influenza i modelli di attivazione cerebrale? Design fMRI evento-correlati vs. bloccati. Behav. Brain Funct. 4:30. doi: 10.1186/1744-9081-4-30
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Buss, AH e Perry, M. (1992). Il questionario sull'aggressività. J. Pers. Soc. Psychol. 63, 452–459. doi: 10.1037/0022-3514.63.3.452
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Carnes, P. (2013). Contrariamente all'amore: aiutare il dipendente sessuale . Center City, MN: Hazelden Publishing.
Carnes, P., Green, B., e Carnes, S. (2010). Uguali ma diversi: riorientare il Sexual Addiction Screening Test (SAST) per riflettere l'orientamento e il genere. Sex. Addict. Compuls. 17, 7–30. doi: 10.1080/10720161003604087
Carnes, PJ (2001). Fuori dall'ombra: comprendere la dipendenza sessuale . Center City, MN: Hazelden Publishing.
Coleman, E. (1992). Il tuo paziente soffre di comportamento sessuale compulsivo? Psychiatr. Ann. 22, 320–325. doi: 10.3928/0048-5713-19920601-09
Crockford, DN, Goodyear, B., Edwards, J., Quickfall, J., e el-Guebaly, N. (2005). Attività cerebrale indotta da stimoli in giocatori d'azzardo patologici. Biol. Psychiatry 58, 787–795. doi: 10.1016/j.biopsych.2005.04.037
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Delgado, MR (2007). Risposte legate alla ricompensa nello striato umano. Ann. NY Acad. Sci. 1104, 70–88. doi: 10.1196/annals.1390.002
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Devinsky, O., Morrell, MJ e Vogt, BA (1995). Contributi della corteccia cingolata anteriore al comportamento. Brain 118, 279–306. doi: 10.1093/brain/118.1.279
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Feil, J., Sheppard, D., Fitzgerald, PB, Yücel, M., Lubman, DI e Bradshaw, JL (2010). Dipendenza, ricerca compulsiva di droghe e ruolo dei meccanismi frontostriatali nella regolazione del controllo inibitorio. Neurosci. Biobehav. Rev. 35, 248–275. doi: 10.1016/j.neubiorev.2010.03.001
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Ferretti, A., Caulo, M., Del Gratta, C., Di Matteo, R., Merla, A., Montorsi, F., et al. (2005). Dinamica dell'eccitazione sessuale maschile: componenti distinti dell'attivazione cerebrale rivelati dalla fMRI. Neuroimmagine 26, 1086–1096. doi: 10.1016/j.neuroimage.2005.03.025
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Franklin, TR, Wang, Z., Wang, J., Sciortino, N., Harper, D., Li, Y., et al. (2007). Attivazione limbica in risposta a stimoli legati al fumo di sigaretta indipendentemente dall'astinenza da nicotina: uno studio fMRI di perfusione. Neuropsychopharmacology 32, 2301–2309. doi: 10.1038/sj.npp.1301371
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Garavan, H., Pankiewicz, J., Bloom, A., Cho, JK, Sperry, L., Ross, TJ, et al. (2000). Desiderio di cocaina indotto da stimoli: specificità neuroanatomica per i consumatori di droga e gli stimoli legati alla droga. Am. J. Psychiatry 157, 1789–1798. doi: 10.1176/appi.ajp.157.11.1789
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Georgiadis, JR e Kringelbach, ML (2012). Il ciclo di risposta sessuale umana: evidenze di neuroimaging che collegano il sesso ad altri piaceri. Prog. Neurobiol. 98, 49–81. doi: 10.1016/j.pneurobio.2012.05.004
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Goldman-Rakic, PS e Leung, HC (2002). "Architettura funzionale della corteccia prefrontale dorsolaterale nelle scimmie e negli esseri umani", in Principles of Frontal Lobe Function , a cura di DT Stuss e RT Knight (New York, NY: Oxford University Press), 85-95.
Goldstein, RZ e Volkow, ND (2011). Disfunzione della corteccia prefrontale nella dipendenza: risultati di neuroimaging e implicazioni cliniche. Nat. Rev. Neurosci. 12, 652–669. doi: 10.1038/nrn3119
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Goodman, A. (1993). Diagnosi e trattamento della dipendenza sessuale. J. Sex Marital Ther. 19, 225–251. doi: 10.1080/00926239308404908
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Goodman, A. (2001). Cosa c'è in un nome? Terminologia per designare una sindrome di comportamento sessuale compulsivo. Sexual Addict. Compuls. 8, 191–213. doi: 10.1080/107201601753459919
Hamann, S., Herman, RA, Nolan, CL e Wallen, K. (2004). Uomini e donne differiscono nella risposta dell'amigdala agli stimoli sessuali visivi. Nat. Neurosci . 7, 411–416. doi: 10.1038/nn1208
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Janssen, E., e Everaerd, W. (1993). Determinanti dell'eccitazione sessuale maschile. Ann. Rev. Sex Res. 4, 211–245. doi: 10.1080/10532528.1993.10559888
Kafka, MP (2010). Disturbo ipersessuale: una diagnosi proposta per il DSM-V. Arch. Sex. Behav. 39, 377–400. doi: 10.1007/s10508-009-9574-7
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Kagerer, S., Wehrum, S., Klucken, T., Walter, B., Vaitl, D., e Stark, R. (2014). Il sesso attrae: indagine sulle differenze individuali nel bias attentivo verso gli stimoli sessuali. PLoS ONE 9:e107795. doi: 10.1371/journal.pone.0107795
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Karama, S., Lecours, AR, Leroux, JM, Bourgouin, P., Beaudoin, G., Joubert, S., et al. (2002). Aree di attivazione cerebrale in uomini e donne durante la visione di estratti di film erotici. Hum. Brain Mapp , 16, 1–13. doi: 10.1002/hbm.10014
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Kim, M., e Kwak, JB (2011). Dipendenza dal cybersex giovanile nell'era dei media digitali. J. Humanit. 29, 283–326.
Ko, CH, Liu, GC, Hsiao, S., Yen, JY, Yang, MJ, Lin, WC, et al. (2009). Attività cerebrali associate all'impulso di gioco nella dipendenza da videogiochi online. J. Psychiatr. Res. 43, 739–747. doi: 10.1016/j.jpsychires.2008.09.012
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Kor, A., Fogel, Y., Reid, RC e Potenza, MN (2013). Il disturbo ipersessuale dovrebbe essere classificato come una dipendenza? Sex. Addict. Compuls. 20, 27–47. doi: 10.1080/10720162.2013.768132
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Kühn, S., e Gallinat, J. (2014). Struttura cerebrale e connettività funzionale associate al consumo di pornografia: il cervello e la pornografia. JAMA Psychiatry 71, 827–834. doi: 10.1001/jamapsychiatry.2014.93
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Kuzma, JM e Black, DW (2008). Epidemiologia, prevalenza e storia naturale del comportamento sessuale compulsivo. Psychiatr. Clin. North Am. 31, 603–611. doi: 10.1016/j.psc.2008.06.005
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Laier, C., e Brand, M. (2014). Evidenze empiriche e considerazioni teoriche sui fattori che contribuiscono alla dipendenza dal cybersex da una prospettiva cognitivo-comportamentale. Sex. Addict. Compuls. 21, 305–321. doi: 10.1080/10720162.2014.970722
Laier, C., Pawlikowski, M., Pekal, J., Schulte, FP e Brand, M. (2013). Dipendenza dal cybersex: l'eccitazione sessuale provata guardando materiale pornografico e non durante contatti sessuali reali fa la differenza. J. Behav. Addict. 2, 100–107. doi: 10.1556/JBA.2.2013.002
Lang, PJ, Bradley, MM e Cuthbert, BN (2008). International Affective Picture System (IAPS): Valutazione affettiva delle immagini e manuale di istruzioni . Rapporto tecnico A-8. Gainesville, FL: Università della Florida.
MacLean, PD e Ploog, DW (1962). Rappresentazione cerebrale dell'erezione peniena. J. Neurophysiol. 25, 29–55.
McClernon, FJ, Kozink, RV, Lutz, AM e Rose, JE (2009). L'astinenza dal fumo per 24 ore potenzia l'attivazione fMRI-BOLD in risposta a stimoli legati al fumo nella corteccia cerebrale e nello striato dorsale. Psychopharmacology 204, 25–35. doi: 10.1007/s00213-008-1436-9
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Moulier, V., Mouras, H., Pélégrini-Issac, M., Glutron, D., Rouxel, R., Grandjean, B., et al. (2006). Correlati neuroanatomici dell'erezione del pene evocata da stimoli fotografici nei maschi umani. Neuroimmagine 33, 689–699. doi: 10.1016/j.neuroimage.2006.06.037
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Patton, JH, Stanford, MS e Barratt, ES (1995). Struttura fattoriale della Barratt Impulsiveness Scale. J. Clin. Psychol. 51, 768–774.
Paul, T., Schiffer, B., Zwarg, T., Krüger, TH, Karama, S., Schedlowski, M., et al. (2008). Risposta cerebrale a stimoli sessuali visivi in uomini eterosessuali e omosessuali. Hum. Brain Mapp. 29, 726–735. doi: 10.1002/hbm.20435
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Pizzagalli, D., Pascual-Marqui, RD, Nitschke, JB, Oakes, TR, Larson, CL, Abercrombie, HC, et al. (2001). Attività del cingolo anteriore come predittore del grado di risposta al trattamento nella depressione maggiore: evidenze dall'analisi della tomografia elettrica cerebrale. Am. J. Psychiatry 158, 405–415. doi: 10.1176/appi.ajp.158.3.405
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Ponseti, J., Bosinski, HA, Wolff, S., Peller, M., Jansen, O., Mehdorn, HM, et al. (2006). Un endofenotipo funzionale per l'orientamento sessuale negli esseri umani. Neuroimage 33, 825–833. doi: 10.1016/j.neuroimage.2006.08.002
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Redouté, J., Stoléru, S., Grégoire, MC, Costes, N., Cinotti, L., Lavenne, F., et al. (2000). Elaborazione cerebrale degli stimoli sessuali visivi nei maschi umani. Ronzio. Mappa del cervello. 11, 162–177. doi: 10.1002/1097-0193(200011)11:3<162::AID-HBM30>3.0.CO;2-A
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Reid, RC, Garos, S., e Carpenter, BN (2011). Affidabilità, validità e sviluppo psicometrico dell'Inventario del Comportamento Ipersessuale in un campione ambulatoriale di uomini. Sex. Addict. Compuls. 18, 30–51. doi: 10.1080/10720162.2011.555709
Safron, A., Barch, B., Bailey, JM, Gitelman, DR, Parrish, TB e Reber, PJ (2007). Correlati neurali dell'eccitazione sessuale negli uomini omosessuali ed eterosessuali. Behav. Neurosci. 121, 237–248. doi: 10.1037/0735-7044.121.2.237
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Schafer, A., Schienle, A., e Vaitl, D. (2005). Il tipo e il design dello stimolo influenzano le risposte emodinamiche verso stimoli visivi che inducono disgusto e paura. Int. J. Psychophysiol. 57, 53–59. doi: 10.1016/j.ijpsycho.2005.01.011
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Schneider, JP e Schneider, B. (1991). Sesso, bugie e perdono: coppie che parlano apertamente della guarigione dalla dipendenza sessuale. Center City, MN: Hazeldon Publishing.
Seegers, JA (2003). La prevalenza dei sintomi di dipendenza sessuale nei campus universitari. Sex. Addict. Compuls. 10, 247–258. doi: 10.1080/713775413
Stoléru, S., Fonteille, V., Cornélis, C., Joyal, C., e Moulier, V. (2012). Studi di neuroimaging funzionale sull'eccitazione sessuale e sull'orgasmo in uomini e donne sani: una revisione e una meta-analisi. Neurosci. Biobehav. Rev. 36, 1481–1509. doi: 10.1016/j.neubiorev.2012.03.006
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Tapert, SF, Cheung, EH, Brown, GG, Frank, LR, Paulus, MP, Schweinsburg, AD, et al. (2003). Risposta neurale agli stimoli alcolici negli adolescenti con disturbo da uso di alcol. Arch. Gen. Psychiatry 60, 727–735. doi: 10.1001/archpsyc.60.7.727
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Vanderschuren, LJ e Everitt, BJ (2005). Meccanismi comportamentali e neurali della ricerca compulsiva di droghe. Eur. J. Pharmacol. 526, 77–88. doi: 10.1016/j.ejphar.2005.09.037
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Voon, V., Mole, TB, Banca, P., Porter, L., Morris, L., Mitchell, S., et al. (2014). Correlati neurali della reattività agli stimoli sessuali in individui con e senza comportamenti sessuali compulsivi. PLoS ONE 9:e102419. doi: 10.1371/journal.pone.0102419
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Weiss, D. (2004). La prevalenza della depressione nei dipendenti sessuali maschi residenti negli Stati Uniti. Sex. Addict. Compulsivity 11, 57–69. doi: 10.1080/10720160490458247
Zarahn, E., Aguirre, G., e D'Esposito, M. (1997). Un disegno sperimentale basato su prove per fMRI. Neuroimage 6, 122–138. doi: 10.1006/nimg.1997.0279
Abstract su PubMed | Testo completo su CrossRef | Google Scholar
Parole chiave: comportamento ipersessuale problematico, desiderio sessuale, risonanza magnetica funzionale, corteccia prefrontale dorsolaterale, risposta emodinamica
Citazione: Seok JW e Sohn JH (2015) Substrati neurali del desiderio sessuale in individui con comportamento ipersessuale problematico. Front. Behav. Neurosci . 9:321. doi: 10.3389/fnbeh.2015.00321
Ricevuto: 18 giugno 2015; Accettato: 10 novembre 2015;
Pubblicato: 30 novembre 2015.
A cura di:
Morten L. Kringelbach , Università di Oxford, Regno Unito e Università di Aarhus, Danimarca, Regno Unito
Recensito da:
Marchio di Matthias, Università Duisburg-Essen, Germania
Janniko Georgiadis, University Medical Center Groningen, Paesi Bassi
Copyright © 2015 Seok e Sohn. Questo è un articolo ad accesso aperto distribuito secondo i termini della licenza Creative Commons Attribuzione (CC BY) . L'uso, la distribuzione o la riproduzione in altri contesti sono consentiti, a condizione che vengano citati l'autore o gli autori originali o il licenziante e che venga citata la pubblicazione originale in questa rivista, in conformità con le prassi accademiche accettate. Non è consentito alcun uso, distribuzione o riproduzione che non sia conforme a questi termini.
*Corrispondenza: Jin-Hun Sohn, [email protected]