Neurosci Biobehav Rev. 2011 年1 月;35(3):939-55。 doi:10.1016/j.neubiorev.2010.10.014。2010 年 11 月 2 日線上發表。
- 1Bernard B. Brodie意大利加利福尼亞州09042 Monserrato,Cittadella Universitaria,卡利亞里大學神經科學系。 [email protected]
抽象
當注射到中樞神經系統時,催產素是陰莖勃起的有效誘導劑。 在雄性大鼠中,催產素的勃起效應最敏感的腦區是下丘腦的室旁核。 該核和周圍區域包含突出到下丘腦外腦區域和脊髓的所有催產素神經元的細胞體。 該綜述顯示催產素在註射到這些區域中的一些區域時也誘導陰莖勃起(例如,腹側被蓋區,海馬腹側下棘,扁桃體後內側皮質核和胸腰椎脊髓)。 顯微注射研究結合腦內微透析和雙免疫熒光研究表明,這些區域的催產素直接或間接(主要通過谷氨酸)中腦邊緣多巴胺能神經元激活。 在伏隔核中釋放的多巴胺反過來激活神經通路,導致室旁核中的下丘腦多巴胺能神經元的激活。 這不僅激活投射到脊髓的陰性神經元神經元並介導陰莖勃起,而且還激活那些投射到上述下丘腦外區域的神經元,直接或間接地(通過谷氨酸)調節控制動機和獎賞的中腦邊緣多巴胺能神經元的活性。 這些神經通路可以構成一個複雜的假設循環,它不僅在性活動的完成階段(勃起功能和交配)中起作用,而且在性行為的預期階段的動機和獎勵方面起作用。
1.Introduction
陰莖勃起是雄性動物的一種性反應,在包括人類在內的哺乳動物的繁殖中起著關鍵作用,而且在與繁殖無關的其他情況下也能觀察到陰莖勃起。根據陰莖勃起發生的背景,不同的中樞和周邊神經和/或體液機制參與其調節(參見 Meisel 和 Sachs,1994;Argiolas 和 Melis,1995、2004、2005;Sachs,2000、2007;McKenna,2000;Giuliano 和 Rampin,2000,007; Argiolas,1995a、2003;Hull 等,2002)。在控制陰莖勃起的中樞神經傳導物質和神經勝肽中,最著名的有多巴胺、血清素、興奮性胺基酸、一氧化氮、促腎上腺皮質激素、催產素和鴉片肽。它們可以透過作用於多個腦區來促進或抑制陰莖勃起,例如內側視前區、下丘腦室旁核、腹側被蓋區、海馬、杏仁核、終紋床核、伏隔核、延髓和脊髓(表1)(參見Meisel和Sachs,1994;Witt和Insel,1994;Stancampiano等人,194; ;Argiolas和Melis,1995,2005;Argiolas,1999;Bancila等人,2002;Giuliano和Rampin,2000;McKenna,2000;Andersson,2001;Hull等人,2002;Coolen等人)。 2004)。
催產素是一種神經垂體肽,因其在哺乳期和分娩中的激素作用而眾所周知,它存在於雌性和雄性中,不僅存在於位於下丘腦的室旁和視上核中的細胞體投射到神經垂體的神經元中,而且還存在於神經元投射中。從室旁核和周圍結構到下丘腦外區域(即隔膜,腹側被蓋區,海馬,杏仁核,延髓和脊髓)。 這些神經元被認為涉及許多中心功能,例如記憶,學習,附屬和社會性行為,包括陰莖勃起和交配行為(參見Buijs,1978; Sofroniew,1983; Argiolas和Gessa,1991; Pedersen等。,1992; Carter,1992; Wagner和Clemens,1993; Ivell和Russel,1995; Carter等,1997; Tang等,1998; Veronneau-Longueville等,1999)。 實際上,催產素促進小鼠,大鼠,兔和猴的勃起功能和男性性行為(參見Argiolas和Gessa,1991; Carter,1992; Pedersen等,1992; Argiolas和Melis,1995,2004; Argiolas,1999)。 這種情況也可能發生在人類身上,因為血漿催產素會因性刺激而增加,特別是在射精時(Carmichael等,1987;墨菲等,1987)以及乳房和生殖器的操縱,這通常發生在性行為中性交(Tindall,1974)。
催產素對男性性行為的促進作用首先通過靜脈注射催產素來降低第一次射精的潛伏期和延遲與接受性雌性配對的雄性兔的性衰竭的能力來證明(Melin和Kihlstrom,1963)。 然而,催產素的性作用僅在八十年代才得到明確認可。 然後發現以納克量中心給予的催產素能夠誘導陰莖勃起(Argiolas等,1985,1986)並改善雄性大鼠的交配行為(Arletti等,1985),並增加雌性大鼠的脊柱前凸(Arletti)和Bertolini,1985; Caldwell等,1986),顯然通過作用於子宮型催產素受體(參見Argiolas和Melis,1995,2004; Argiolas,1999; Melis和Argiolas,2003;及其中的參考文獻)。 催產素不僅可以改善性功能雄性大鼠(Arletti等,1985)的性行為,還可以改善老年雄性大鼠(Arletti等,1990)和雄性松鼠(Winslow和Insel)中的顯性但不是下屬的性行為。 ,1991)。
催產素的促進勃起作用依賴睪固酮,因為腦下垂體切除術和去勢會消除此作用,而補充睪固酮或其代謝物雌二醇和5'-二氫睪固酮則可恢復此作用(Melis等,1994a)。催產素誘導陰莖勃起最敏感的腦區是下視丘室旁核(Melis等,1986),所有下視丘外催產素能投射均起源於此(見上文)。研究發現,注射低至3 pmol的催產素即可誘發陰莖勃起(以及打哈欠)(見下文2.1節)。雙側注射催產素至海馬CA1區可誘發陰莖勃起,但注射至背側下托(見下文2.3節)、側隔核、尾狀核、內側視前區、下丘腦腹內側核和視上核則無此效果(Melis等,1986)。至於催產素在室旁核誘導性反應的機制,大量研究顯示催產素活化了自身的神經元。與此假設一致,性互動會增加 FOS,即投射到脊髓的室旁核催產素能神經元中立即早期基因 c-fos 的基因產物,這些神經元參與控制陰莖勃起(參見 Witt 和 Insel,1994 年及其參考文獻),並且性功能障礙(例如,成年雄性大鼠無法與卵巢下的、雌激素-雌激素-雌激素-雌激素-雌激素-孕等人,1997 年)。
目前尚不清楚催產素是影響性行為的預期階段還是完成階段。由於催產素能誘導陰莖勃起,且其對交配行為的主要影響是縮短雄性大鼠的射精後間隔(Arletti等人,1985),因此可以合理推測該勝肽能改善性功能。然而,由於催產素還能增加社會性互動(參見 Pedersen 等人,1992;Carter 等人,1997;Ivell 和 Russel,1995),而催產素受體拮抗劑能阻止非接觸性勃起(Melis 等人,1999a),非接觸性102000 是性喚起的勃起指標(參見 Sachiss,1970200019020000is,等人,1998、1999b 及其參考文獻),因此不能排除催產素在性喚起和性動機中可能扮演的角色。
本篇綜述總結了近期研究的已發表和未發表的結果,這些研究表明,催產素不僅在註射到下丘腦室旁核時能誘發陰莖勃起,而且在其他下丘腦外腦區,如腹側被蓋區(Melis 等,2007,2009a;Succu 等,2008)、海馬腹側下和杏仁核後杏仁核(Melisis等,2009b,2010)也能誘發陰莖勃起。這些腦區是邊緣系統的重要組成部分,被認為在動機和獎賞過程中發揮關鍵作用。這些研究表明,催產素參與了包括多巴胺和谷氨酸等其他神經傳導物質在內的神經迴路,以及除室旁核以外的其他腦區,例如腹側被蓋區、伏隔核、海馬體和一些尚未確定的區域。這些迴路可能介導中腦邊緣系統和不確定-下丘腦多巴胺能係統之間的相互作用,並且不僅在男性性行為的完成階段(例如陰莖勃起和交配)發揮作用,而且在性動機和性喚起中也發揮作用,從而為解釋性活動的動機和獎賞特性提供了神經基礎。
2。 催產素通過作用於不同的大腦區域來影響陰莖勃起
2.1。 下丘腦的室旁核
如上所述,下丘腦的室旁核很快被確定為對催產素的勃起效應最敏感的腦區。 當單側注射到該細胞核中時,發現催產素在低至3 ng(3 pmol)的劑量下具有活性(Melis等,1986)。 結構 - 活性關係研究表明,催產素誘導的陰莖勃起是由子宮型催產素受體介導的,與Ca2 +流入投射到下丘腦外腦區域的催產素神經元細胞體和一氧化氮合成酶的激活有關。 反過來,一氧化氮通過充當細胞內信使而具有尚未知的機制(不涉及鳥苷酸環化酶),導致催產素神經元向脊髓和下丘腦外區域的激活,誘導陰莖勃起(圖1)(見下面是Argiolas和Melis,1995,2004,2005及其中的參考文獻)。 催產素激活其自身神經元的能力
圖1。 (MISSING)催產素神經元的示意圖,其起源於下丘腦的室旁核並且突出到下丘腦外腦區,例如脊髓,VTA,海馬,杏仁核等。這些神經元的激活通過多巴胺,興奮性氨基酸,催產素本身,己二酰類似物肽和VGF衍生肽導致陰莖勃起,其可通過刺激GABA能,阿片樣物質和大麻素CB1受體而減少和/或消除。 催產素神經元的激活繼發於這些神經元中存在的一氧化氮合酶的激活。 事實上,通過刺激多巴胺,興奮性氨基酸或催產素受體或外源性一氧化氮形成的內源性一氧化氮,如源自直接進入室旁核的一氧化氮供體,通過尚未明確的機制激活催產素神經元,顯然與其無關。刺激鳥苷酸環化酶。 這反過來導致脊髓和下丘腦外腦區的催產素釋放。 關於催產素在這些區域釋放時誘導陰莖勃起的機制的一些細節,例如VTA,腹側下丘腦和杏仁核在相應的腦區部分中描述。 在這裡,催產素作用於其自身的受體並增加NO的產生,這導致如PVN中發現的陰莖勃起。 然而,與PVN不同,在尾部VTA NO中激活鳥苷酸環化酶。 這導致cGMP濃度增加,導致中腦邊緣多巴胺能神經元的激活和陰莖勃起。 在VS NO中激活投射到海馬外區域的谷氨酸能神經元,包括VTA。 VTA中的谷氨酸依次激活催產素中發現的中腦邊緣多巴胺能神經元。 當在生理環境中發生陰莖勃起時,即當雄性大鼠被放置在難以接近的接受性雌性(例如,非接觸性勃起)的存在下或在交配期間時,類似於上述機制的機制也可能起作用。
室旁核中存在催產素的觀點得到了以下研究的支持:(1) 下丘腦室旁核中存在催產素受體(Freund-Mercier 等,1987;Freund-Mercier 和 Stoeckel,1995);(2) 催產素在體外和體內均能促進自身釋放(Freund-1984;(3) 催產素透過作用於室旁核來興奮自身神經元(Yamashita 等,1987)。此外,在下視丘室旁核和視上核也發現了與大細胞催產素能神經元胞體相連的催產素能突觸(Theodosis,1985)。最後,透過電解或化學興奮性毒性損傷室旁核,破壞中樞催產素能神經元,導致中樞神經系統和脊髓中的催產素含量完全耗竭,不僅消除了催產素的促勃起作用,而且損害了藥物誘導的陰莖勃起和非接觸性勃起(見下文以及Argiolas等人,1987a,b;Liu等人,1997年及其參考文獻)。使用強效且選擇性的催產素受體拮抗劑,也能獲得與室旁核損傷類似的結果。事實上,將這些化合物以納克級劑量注射到室旁核中,可完全阻止催產素誘導的陰莖勃起;而當注射到側腦室時,不僅能阻止催產素本身誘導的陰莖勃起,還能阻止藥物誘導的陰莖勃起(參見下文第3節以及Arg iolas和Melis,1995、2004、2005及其參考文獻)和非接觸性勃起(Melis等,1999a),並且還能極為有效地抑制性成熟雄性大鼠的交配行為(Argiolas等,1988)。此外,性行為會增加FOS的表達,FOS是投射到脊髓的室旁核催產素能神經元中即刻早期基因c-fos的基因產物,這些神經元參與陰莖勃起的控制(參見Witt和Insel,1994及其參考文獻)。最後,性功能障礙(例如,成年雄性大鼠無法與雌激素-黃體素預處理的接受雌性大鼠交配)在雄性大鼠中也與下丘腦室旁核中催產素 mRNA 和一氧化氮合酶水平低有關(Benelli 等人,1995;Arletti 等人,1997)(有關這些研究的詳細綜述,請參見 ArgioArglas,1994;
2.2。 腹側被蓋區
腹側被蓋區是近期才被發現的腦區,催產素在該區域可誘發陰莖勃起。此區域包含起源於室旁核的催產素能神經末梢和催產素受體(Freund-Mercier等,1987;Vaccari等,1998)。更確切地說,研究發現,單側注射催產素至腹側被蓋區尾側(而非頭側)可誘導陰莖勃起,且呈劑量依賴性(Melis等,2007)。其有效劑量高於注射至室旁核所需的劑量,與注射至海馬腹側下託或杏仁核後內側皮質核誘導陰莖勃起所需的劑量相似(見下文)。顯然,促進勃起作用是透過活化投射到伏隔核外殼的中腦邊緣多巴胺能神經元介導的,而伏隔核外殼又活化投射到不確定下丘腦多巴胺能神經元的未知神經通路,這些神經元會影響介導陰莖勃起的室旁催產素能神經元(Melis 等人,2007,2009a)。
關於催產素激活腹側被蓋區多巴胺能神經傳遞的機制,現有數據表明,催產素刺激位於中腦邊緣多巴胺能神經元胞體內的催產素受體。這會增加多巴胺能神經元胞體內的Ca2+內流,進而活化一氧化氮合成酶(Succu等人,2008)。與室旁核(見下文第3節)不同,一氧化氮反過來活化鳥苷酸環化酶,進而增加環磷酸鳥苷(cGMP)的濃度。根據此機制,在註射催產素之前,將強效催產素拮抗劑 d(CH2)5Tyr(Me)2-Orn8-血管加壓素或強效神經元一氧化氮合酶抑制劑 S-甲基硫代-l-瓜氨酸注射到尾側腹被蓋區,可以消除催產素引起的陰莖勃起和多巴胺保護核內的多巴胺隔核殼濃度增加。此外,8-溴環鳥苷酸(8-bromo-cyclic GMP)是一種活性磷酸二酯酶抗性環鳥苷酸類似物,當注射到尾腹被蓋區時,可誘導陰莖勃起,並增加伏隔核殼部的細胞外多巴胺濃度,這與向尾腹被蓋區注射催產素的效果相同(Succu 等人,2008,080)。
與此機轉一致,強效多巴胺D2受體拮抗劑氟哌啶醇注射到伏隔核殼部可降低注射到腹側被蓋區的催產素誘導的陰莖勃起(Melis等,2007)。上述機制也得到了雙重免疫螢光研究的支持,該研究表明催產素纖維會壓迫尾側腹側被蓋區多巴胺能神經元的胞體,這些神經元先前已用逆行示踪劑Fluorogold標記,該示踪劑已註射到伏隔核殼部(Melis等,2007;Succu等,2008)。伏隔核中多巴胺能神經元和多巴胺受體的激活,反過來又會激活尚未明確的神經通路,這些通路刺激下丘腦不確定核的多巴胺能神經元,使其在室旁核釋放多巴胺,從而激活投射到脊髓並介導陰莖勃起的催產素能神經元(見上文及Melis等人,2007;Succu等人,2007,2007,2007)。事實上,在尾側腹被蓋區注射足以誘導陰莖勃起的催產素,不僅增加了伏隔核透析液中的細胞外多巴胺濃度,也增加了室旁核透析液中的細胞外多巴胺濃度(Succu等人,2007)。
2.3。 海馬
海馬CA1區是另一個富含催產素能纖維和受體的腦區,早期研究已證實,注射催產素可誘發陰莖勃起(參見Bujis,1978;Sofroniew,1983)。然而,與室旁核不同的是,催產素在CA1區只有在雙側注射且劑量高於室旁核有效劑量時才能誘發陰莖勃起(Melis等,1986;Chen等,1992)。早期研究發現,向下托注射催產素無效。然而,近期較精細的微量注射研究發現,在腹側下託的一個區域注射催產素可以劑量依賴性地誘發陰莖勃起(Melis等,2009b)。在與單側注射後腹側被蓋區(VTA)有效劑量相似的劑量下,向該腦區注射催產素可觀察到促勃起作用(Melis等人,2007),這與室旁核(PVN)中觀察到的促勃起作用相似。顯然,在腹側下托注射催產素可透過活化含有硝酸合成酶的神經元中的催產素受體來誘導陰莖勃起,導致一氧化氮生成增加。一氧化氮反過來作為細胞間信使激活谷氨酸神經傳遞,從而導致陰莖勃起,這可能是透過從腹側下托到海馬外腦區的神經(谷氨酸能)傳出投射來調節中腦邊緣多巴胺能神經元(例如,腹側被蓋區、前額葉皮質、室旁核)的活動(見下文和 Melis,2007,2009b;Succu 等人,2008)。
這種作用機制得到腦內微透析實驗的支持,該實驗表明催產素以誘導陰莖勃起的劑量注入腹側下托,增加了腹側下丘腦透析液中的一氧化氮產生和細胞外谷氨酸濃度(Melis等。 ,2010)和伏隔核中的細胞外多巴胺(Melis等,2007)。 這些反應不僅受到催產素受體拮抗劑d(CH2)5Tyr(Me)2-Orn8-血管緊張素的拮抗作用,而且還被神經元型一氧化氮合酶抑製劑S-甲基 - 硫代 - 瓜氨酸和一氧化氮清除劑血紅蛋白所拮抗。在催產素前幾分鐘進入腹側下丘(Melis等,2010)。
此外,與此作用機轉相符,向腹側下托注射NMDA活化麩胺酸能神經傳導可誘發陰莖勃起(Melis等,2010)。目前尚不清楚腹側下托傳出投射的表型,這些投射可活化中腦邊緣多巴胺能神經元並增加伏隔核細胞外多巴胺水平。然而,由於注射到腹側下託的催產素引起的陰莖勃起與腹側被蓋區透析液中細胞外谷氨酸的增加同時發生,而不是與伏隔核的細胞外谷氨酸的增加同時發生,並且被注射到腹側被蓋區而不是伏隔核的強效非競爭性興奮性氨基酸受體拮抗劑 (+)MK-801 (Wood等,2009b),因此這些投射可能導致腹側被蓋區谷氨酸能神經傳遞的激活,進而激活投射到伏隔核的中腦邊緣多巴胺能神經元。目前尚不清楚,在腹側下托注射催產素後,腹側被蓋區谷氨酸濃度的升高是由下托神經元釋放,還是由其他腦區(例如前額葉皮質)的神經元釋放。然而,這會導致中腦邊緣多巴胺能神經元的激活,並增加伏隔核中多巴胺的釋放。伏隔核中多巴胺受體的活化會活化下視丘不確定多巴胺能神經元,從而在室旁核中釋放多巴胺,進而活化投射到脊髓並介導陰莖勃起的催產素能神經元(參見上文以及 Melis 等人,2007,2009a;Succu 等人,2008)。
2.4。 杏仁核
杏仁核是富含催產素纖維和受體的另一腦區(參見Freund-Mercier等,1987; Vaccari等,1998; Uhl-Bronner等,2005)。 這裡的催產素被認為涉及不同的功能,從抗焦慮,社會記憶和認知,社會強化學習,情感共情,情緒面孔處理和人類恐懼到勃起功能和性行為(參見Kondo等,1998; Dominguez et例如,2001; Ebner等,2005; Huber等,2005; Domes等,2007; Petrovic等,2008; Lee等,2009; Donaldson和Young,2009; Hurlemann等。 ,2010)。 然而,僅在最近才發現催產素在雄性大鼠中誘導陰莖勃起的能力(Melis等人,2009b)。 這種反應伴隨著從伏隔核外殼獲得的透析液中細胞外多巴胺濃度的增加,如催產素注射到腹側下丘(Melis等,2009b)後發現的。 注射到杏仁核的後內側皮質核中的催產素誘導陰莖勃起的機制目前尚不清楚。 現有數據顯示,陰道勃起和伏隔核中透析液中細胞外多巴胺濃度的增加都是由催產素受體的激活所介導的,因為這兩種反應都被催產素受體拮抗劑d(CH2)5Tyr廢除( Me)在催產素前幾分鐘注射杏仁核中的2-Orn8-血管緊張素(Melis等,2009b)。
無論催產素在杏仁核後內側皮質核中活化何種機制,該勝肽誘導的性反應都會被注射到伏隔核殼部的順式氟哌噻噸阻斷所有多巴胺能受體,以及注射到腹側被蓋區(而非伏隔核)的(+)MK-801阻斷NMDA受體所消除,這與注射到腹側下託的催產素(Melbis)的情況類似,Bbis(Melbis)。這表明,注射到杏仁核後內側核的催產素激活了腹側被蓋區的谷氨酸能神經傳遞。這反過來又激活了中腦邊緣多巴胺能神經元,最終導致陰莖勃起。鑑於有研究表明,杏仁核的這一核與腹側下託之間存在神經通路連接(Canteras 等人,1995;French 和 Totterdell,2003),這些發現提出了這兩個腦區之間可能存在相互作用的可能性,儘管已經描述了從杏仁核到伏隔核或腹側被蓋區的直接通路(Kelley 和 Domesick,19806)。
2.5。 脊髓
脊髓是中樞神經系統的另一個區域,含有催產素纖維和受體(Freund-Mercier等,1987; Uhl-Bronner等,2005),其中催產素誘導陰莖勃起(Tang et al。,1998) ; Veronneau-Longueville等,1999; Giuliano和Rampin,2000; Giuliano等,2001)。 如上所述,這些催產素纖維起源於下丘腦的室旁核並且有助於下行通路控制介導陰莖勃起的脊髓自主神經元。 實際上,這些纖維在胸腰椎和腰骶道中的背角神經節前交感神經和副交感神經細胞柱中形成突觸接觸,脊髓神經元支配陰莖海綿體(Marson和McKenna,1996; Giuliano和Rampin,2000; Giuliano等。 ,2001)。 這些突觸接觸通過標記源自陰莖的脊髓神經元並通過注射到海綿體中的特定逆行示踪劑到達脊髓來證明,結合雙免疫熒光和共聚焦激光顯微鏡研究(Tang等,1998; Veronneau-Longueville)等人,1999)。 與這些研究一致,在麻醉的雄性大鼠中,鞘內註射累積劑量的催產素在腰骶部而不是胸腰椎水平,引起海綿體內壓力以劑量依賴性方式上升。 通過用d(CH2)5Tyr(Me)2-Orn8-血管緊張素和骨盆神經切片(Giuliano和Rampin,2000; Giuliano等,2001)阻斷催產素受體來消除這些作用。 這些結果表明,作用於腰骶脊髓的催產素增加了海綿體內的壓力,並且表明在室旁核的生理活化期間釋放的催產素是突出到海綿體的脊柱前勃起神經元的有效激活劑。 有趣的是,催產素發揮其勃起作用的這些前勃起的脊髓神經元也接受來自延髓網狀結構的細胞核巨噬細胞的5-羥色胺能神經元的突觸接觸(Marson和McKenna,1992; Tang等。,1998)。 這些5-羥色胺能神經元的破壞促進了雄性大鼠的射精和陰莖反射(Marson和McKenna,1992; Yells等,1992)。 由於刺激5HT2C受體的藥物在腦室內給予陰莖勃起而不進入室旁核,並且阻斷5HT2C受體的藥物也會減少多巴胺激動劑和催產素誘導的陰莖勃起,而多巴胺拮抗劑不會減少5HT2C激動劑誘導的陰莖勃起(參見Stancampiano等,1994及其中的參考文獻),還提出催產素促進勃起的5HT2C受體在腰骶脊髓水平上的作用(Stancampiano等,1994)。 或者,催產素可能通過直接作用於這些神經元起源的細胞核(參見Stancampiano等,1994)而影響脊髓下行5-羥色胺能神經元的活性。 與此可能性相符的是,有研究描述了一條起源於室旁核並到達延髓網狀結構鉅細胞旁核的催產素能通路(Bancila 等,2002),並且脊髓中位於多巴胺和催產素受體下游的 5HT2C 受體的激活被認為是這些化合物甚至 ACTH-MSH 肽的促勃起作用的常見機制(Kimura 等,2008)。
3。 中樞神經系統中催產素,多巴胺和谷氨酸與陰莖勃起之間的相互作用
如第一節所述,中樞神經系統中所有催產素能神經元均起源於室旁核及其周圍結構。這些神經元的活動受多種神經傳導物質和/或神經勝肽的調控。在室旁核層面研究最多的神經傳導物質和/或神經勝肽包括多巴胺、谷氨酸、γ-氨基丁酸(GABA)、一氧化氮、內源性大麻素、阿片肽、生長激素釋放肽、VGF相關勝肽以及催產素本身。多巴胺、谷氨酸、生長激素釋放肽、VGF衍生肽和催產素具有刺激作用,例如,當這些化合物及其激動劑注射到室旁核時,可促進陰莖勃起;而GABA、阿片肽和內源性大麻素具有抑製作用,例如,這些化合物或其激動劑可抑制陰莖勃起(參見Meisel和Sach s,1994;Witt和Insel,1994;Argiolas和Melis,1995、2004、2005;Giuliano和Rampin,2000、2004;McKenna,2000;Andersson,2001;Hull等人,2002)。
幾行實驗證據表明,這些催產素神經元和上述神經遞質和神經肽參與控制不同生理環境中的勃起功能和性行為。 此外,在下丘腦外部區域釋放的催產素,例如腹側被蓋區,海馬及其區域,杏仁核和脊髓可能影響催產素突觸撞擊的那些神經元的活動。 目前,唯一對陰莖勃起有重要意義的神經元,其中催產素突觸撞擊,確定地確定,是尾側腹側被蓋區的中腦邊緣多巴胺能神經元的細胞體,突出到伏隔核的外殼(Melis等,2007) ; Succu等人,2008),以及從腰骶管突出到海綿狀腫瘤的勃起脊柱神經元(參見Giuliano和Rampin,2000; Giuliano等,2001)(另見2.2和2.5部分) 。 事實上,儘管在腹側下丘腦,杏仁核和脊髓中也發現了催產素性突觸和受體,但這些區域對於陰莖勃起都很重要(見上文),在這些區域中存在於神經元中的神經遞質類型。哪些催產素神經末梢撞擊,仍然是未知的。
本篇回顧的這一部分簡要總結了近期關於催產素注射到尾側腹側被蓋區、海馬腹側下托和脊髓後促勃起作用機制的文獻。重點關注此勝肽與這些區域中的多巴胺和谷氨酸的相互作用,以及這種相互作用在勃起功能中樞調控中可能發揮的作用。首先簡要概述了多巴胺和谷氨酸對室旁核催產素能神經元的影響,這些神經元在勃起功能中也起著關鍵作用,目的是讓讀者了解該領域的研究尚處於早期階段,因為這些研究已被廣泛綜述(參見Argiolas和Melis,1995、2004、2005;Melis和Argiolas,2003)。此外,本文還特別關注了最新的研究結果,這些結果表明,多巴胺-催產素聯繫和谷氨酸-催產素聯繫不僅在性表現(陰莖勃起和性交)中發揮重要作用,而且在性喚起和性動機中也發揮著重要作用。
3.1。 多巴胺 - 催產素在室旁核中的相互作用
在發現阿撲嗎啡注射到室旁核可誘發陰莖勃起後,人們立即提出了多巴胺激動劑透過活化中樞催產素能神經元來誘發陰莖勃起的理論(Melis 等,1987)。隨後,人們發現腦室內注射催產素受體拮抗劑 d(CH2)5Tyr(Me)2-Orn8-血管加壓素幾乎完全抑制了由腦室內注射催產素以及皮下注射阿撲嗎啡引起的陰莖勃起(Argiolas 等,1987b)。在這些結果之後,其他研究也顯示了類似的結果,當腦室內注射d(CH2)5Tyr(Me)2-Orn8-催產素,並將阿撲嗎啡直接注射到室旁核(Melis等人,1989b ),這表明多巴胺激動劑透過活化投射到下丘腦外腦區,特別是脊髓的室旁催產素能神經元來誘導陰莖勃起(參見Argiolas和Melis,1995、2004、2005)。與此假設一致,最近在麻醉大鼠中發現,非肽類催產素受體拮抗劑阻斷腰骶催產素受體能夠消除多巴胺激動劑阿撲嗎啡引起的陰莖海綿體內壓升高,這為參與陰莖勃起的室旁脊髓催產素通路提供了證據(Baskerville 等人,2009)。
旨在確定負責誘導陰莖勃起的多巴胺受體的研究發現,在室旁核中,多巴胺受體激動劑透過作用於 D2 家族的多巴胺受體來誘導陰莖勃起,這與全身給藥的多巴胺受體激動劑所發現的情況相同(參見 Melis 等人,1987;Eaton 等人,1991;Melis 和 Argiolas,1995a)。因此,將強效混合型 D1/D2 受體激動劑阿撲嗎啡和強效選擇性 D2 受體激動劑喹吡羅注射到下丘腦核中,發現它們能夠以劑量依賴的方式誘導陰莖勃起,而選擇性 D1 受體激動劑 SKF 38393 則不能。這些 D2 受體激動劑誘導的性反應可被 D2 受體拮抗劑(如氟哌啶醇和左舒必利)消除,但不能被選擇性 D1 受體拮抗劑 SCH 23390 消除(Melis 等,1987)。遙測研究也證實了阿撲嗎啡注射到室旁核後能誘發陰莖勃起。研究表明,注射到室旁核的多巴胺激動劑能夠增加清醒雄性大鼠的陰莖海綿體內壓,而不會改變全身血壓(Chen et al., 1999; Giuliano and Allard, 2001),這與全身注射後的結果一致(Bernabè et al., 1999)。這些研究也證實了D2受體的主要作用,因為D1受體激動劑注射到室旁核後通常無法增加陰莖海綿體內壓(Chen et al., 1999)。
當時已有多項實驗證據表明,刺激室旁核D2受體可誘發陰莖勃起,而這些受體位於催產素能神經元的胞體上。首先,室旁核含有多巴胺能神經末梢,這些神經末梢屬於所謂的下視丘不確定多巴胺能神經元。這些神經元的胞體位於Dahlstrom和Fuxe(1964)定義的A13和A14組,廣泛分支並支配多個下丘腦結構,包括投射至神經垂體和/或下丘腦外腦區的室旁核催產素能神經元(Buijs等,1984;Lindvall等,1984)。
這些多巴胺能神經元參與控制陰莖勃起和交配的室旁水平由微透析研究支持,顯示細胞外多巴胺和3,4-二羥基苯乙酸(DOPAC),其主要代謝產物,在其透析液中的濃度增加。當存在不可接近的卵巢切除的雌激素+孕酮引發的接受雌性時,性功能雄性大鼠的室旁核顯示出非接觸性勃起(Melis等,2003)。
當允許與發情雌性交配時,多巴胺和DOPAC的濃度升高更為顯著(Melis等人,2003),這在內側視前區(Hull等人,1995)和伏隔核(Pfaus和Everitt,1995)中均有發現。其次,多項研究表明,刺激室旁核D2受體誘發的陰莖勃起是由這些區域釋放的催產素介導的。相應地,給予能誘發陰莖勃起的劑量的阿撲嗎啡,不僅能提高大鼠和猴子血漿中的催產素濃度(Melis等人,1989a;Cameron等人,1992),還能提高下丘腦外腦區(如海馬)中的催產素濃度(Melis等人,1990)。與這些結果一致,最近的研究表明,向室旁核注射能誘發陰莖勃起的劑量的阿撲嗎啡也能增加伏隔核中的細胞外多巴胺濃度,而向腹側被蓋區注射催產素受體拮抗劑d(CH2)5Tyr(Me)2-Orn8-血管加壓素可降低這種作用(Succuis)等人,20074)。第三,雙側室旁核電解損傷幾乎完全消除了下丘腦外腦區的催產素(Hawthorn等,1985),從而消除了阿撲嗎啡誘導的陰莖勃起(Argiolas等,1987a)。選擇性催產素受體拮抗劑注射到側腦室(而非室旁核)後,可劑量依賴性地降低阿撲嗎啡誘導的陰莖勃起,其效力與這些化合物阻斷催產素受體的效力相當(Melis等,1989b)。催產素受體拮抗劑也能極強地降低催產素以及阿撲嗎啡誘發的男性性行為的促進作用(Argiolas等,1988,1989)。
關於多巴胺或多巴胺受體激動劑激活D2受體,進而增強催產素能神經元活性,從而在下丘腦外腦區和脊髓中釋放催產素的機制,大量實驗數據支持以下假設:D2受體的刺激會增加催產素能神經元胞體內的Ca2+離子濃度,進而活化胞體內存在的鈣調蛋白依賴性酵素-一氧化氮合成酶(Vincent和Kimura,1992;Torres等,1993;Sanchez等,1994;Sato-Suzuki等,1998)。一氧化氮生成增加反過來又會活化催產素能神經元。因此,(1)有機鈣通道阻斷劑和強效選擇性N型電壓依賴性Ca2+通道阻斷劑-芋螺毒素GVIA(McCleskey等人,1987)可阻止阿撲嗎啡引起的陰莖勃起,該阻斷劑被注射到室旁核中(參見Argiolas等人,1990及其參考文獻);(2)一氧化氮合酶抑制劑被注射到室旁核中可阻止阿撲嗎啡引起的陰莖勃起(Melis等人,1994c); (3) 給予能誘導陰莖勃起的劑量的阿撲嗎啡和其他D2受體激動劑,可增加腦內微透析獲得的室旁核透析液中一氧化氮的生成;而給予能降低D2受體激動劑誘導的陰莖勃起的劑量的室旁核一氧化氮合酶抑製劑,則可降低這種一氧化氮的生成(Melis等,1996)。一氧化氮活化室旁核催產素能神經元的機制尚不清楚,但現有數據表明,一氧化氮作為細胞內信使發揮作用,且鳥苷酸環化酶不參與其中。事實上,環磷酸鳥苷(cGMP)的活性磷酸二酯酶抗性類似物8-溴-環磷酸鳥苷(2-Br-cGMP)被注入室旁核後,無法誘導陰莖勃起(圖2)(參見Melis和Argiolas,1995b及其參考文獻)。
上述解釋常被認為缺乏說服力,主要是因為多巴胺D2受體的刺激通常透過不同的G蛋白偶聯機制抑製而非興奮含有這些受體的神經元胞體(參見Sokoloff和Schwartz,1995)。然而,最近發現的G蛋白偶聯多巴胺D4受體(D2受體家族成員,包括D2、D3和D4)為這種差異提供了一種可能的解釋,該解釋與多巴胺直接刺激室旁核催產素能神經元的觀點相符。刺激D4受體可增加含有此受體亞型克隆版本的細胞製備物中的Ca2+內流(Moreland等,2004)。更重要的是,選擇性D4受體激動劑(例如ABT 724)(N-甲基-4-(2-氰基苯基)哌嗪基-3-甲基苯甲酰胺馬來酸鹽)被發現全身給藥後能夠誘導雄性大鼠陰莖勃起(Brioni等人,2004)。而選擇性D2受體亞型激動劑PNU-95666E(R-5,6-二氫-N,N-二甲基-4-咪唑並[4,5,1-i]喹啉-5-胺)則未觀察到此效應(Hsi eh等人,2004),也無法增加含有克隆D4受體亞型的細胞製備物中的Ca2+內流(Brioni等人,2004;Moreland等人,2004)。根據上述假設和發現,PD 168,077(N-甲基-4-(2-氰基苯基)哌嗪-3-甲基苯甲醯胺馬來酸鹽)、PIP-3EA(2-[4-(2-甲氧基苯基)哌嗪-1-基甲基]咪唑並[1,2-a]吡啶)和其他選擇性D4受體激動劑(Heier等人,1997;Melis等人,2006b;Löber等人,2009)在全身注射、腦室內注射和室旁核注射時均能誘導陰莖勃起,儘管其效果不如阿撲嗎啡。這些 D4 受體激動劑的促勃起作用可被選擇性 D4 受體拮抗劑 L-745,870(3-(4-[氯苯基]哌嗪-1-基)-甲基-1H-吡咯並[2,3-B]吡啶三鹽酸鹽)所阻止(Patel 等人,1997;Melis 等人,2005;
最後,上述D4受體激動劑的前勃起效應也被一氧化氮合成酶抑製劑(由室旁核給予)和d(CH2)5Tyr(Me)2-Orn8-血管緊張素(一種選擇性催產素受體拮抗劑)降低。給予icv但不在室旁核。 這些結果符合D4受體激動劑通過激活一氧化氮合酶,並在下丘腦外腦區釋放催產素來刺激催產素神經元的假設,這反過來促進陰莖勃起,如阿撲嗎啡和經典D2激動劑所示(Melis等。,2005,2006b;Löber等,2009)。
上述發現也支持以下假設:多巴胺透過作用於位於室旁核催產素能神經元胞體上的D4受體誘導陰莖勃起,導致Ca2+流入催產素能神經元胞體,進而增加一氧化氮的生成。如前所述,一氧化氮反過來活化下視丘外腦區和脊髓中的催產素能神經元,進而釋放催產素。值得注意的是,多巴胺受體是近期才透過使用高選擇性D2、D3和D4受體抗體以及催產素抗體的雙重免疫螢光研究在室旁核催產素能神經元胞體上發現的。這些研究表明,所有三種 D2 受體亞型(D2、D3 和 D4)均有表達,它們分別共定位於室旁核(以及視上核和內側視前區)催產素能神經元的細胞體中(Baskerville 和 Douglas,2008;Baskerville 等人,2009)。
這為多巴胺及其D2受體激動劑可能透過直接活化投射至上述下丘腦外腦區(例如脊髓、腹側被蓋區、海馬和杏仁核)的催產素能神經元而誘發陰莖勃起提供了強有力的神經解剖學支持。然而,這些發現並未有助於辨識刺激後引起勃起反應的D2受體亞型。遺憾的是,即使是旨在識別室旁核中被多巴胺受體激動劑活化的催產素能神經元的研究也未能提供任何幫助。事實上,儘管混合型多巴胺受體激動劑(例如阿撲嗎啡)、選擇性D2受體激動劑(例如喹吡羅,其作用於所有D2受體亞型)或選擇性D4受體激動劑對不同多巴胺受體亞型的活性各不相同,但它們都能激活催產素能神經元,這可以透過室旁核小細胞催產素蛋白神經元中(FOSBitner(FOSBitner),然而,這項發現最近受到了質疑,因為僅在喹諾羅蘭(主要作用於D2和D3受體亞型)誘導陰莖勃起時才觀察到室旁核催產素能神經元中FOS蛋白的增加,而PD 168077(一種D4受體激動劑)則沒有這種作用,儘管這兩種化合物都能誘導性反應(Baskerville等人,2009)。
然後需要進一步用其他D2受體亞型(主要是D2和D3)的選擇性激動劑進行實驗,以確定每種多巴胺受體亞型在控制室旁水平的勃起功能中的確切作用。 在這方面,如前所述,阿撲嗎啡有效地作用於所有多巴胺受體亞型(參見Brioni等,2004及其中的參考文獻),當注射到室旁時,比D4受體激動劑誘導陰莖勃起更有效。核。 這可以通過與測試的D4受體激動劑相比更高的阿撲嗎啡對D4受體的親和力來解釋,或者,D4受體激動劑可以充當D4受體部分激動劑,或者阿撲嗎啡伴隨的不同多巴胺受體亞型的激活可以與僅由D2受體亞型的D4受體激動劑激活相比,產生更高的催產陰性勃起的催產素神經元活化。
多巴胺D1和D2受體之間的相互作用已在內側視前區層級被描述為控制性行為(參見Hull等人,1989)。如果選擇性D2受體激動劑無法誘導陰莖勃起(Hsieh等人,2004)(但參見Depoortère等人,2009)得到證實,例如即使在將這些化合物注射到室旁核後也是如此,則應詳細分析D3受體單獨或與D4受體共同在激活介導陰莖勃起的產素神經元中催產素神經元中催產素(Baskerville)。可惜的是,目前尚無選擇性D2和D3受體激動劑(例如,在體外對這兩種受體亞型的親和力至少相差四到五個數量級的激動劑)。因此,近期提出的D3受體介導經典D2受體激動劑誘導的陰莖勃起的觀點(主要基於體外實驗中鑑定出的假定D3受體拮抗劑能夠降低經典D2激動劑(如阿撲嗎啡、喹吡羅和普拉克索,這些藥物能有效激活所有多巴胺D2受體亞型)誘導的陰莖勃起(Collins等人,2009)無疑需要透過實驗進行驗證。此外,由於本研究未發現D4受體激動劑對陰莖勃起有任何影響,這與上述研究結果截然相反,後者顯示D4受體激動劑具有促勃起作用,因此此驗證也十分必要。事實上,即使阿撲嗎啡在D4受體敲除小鼠中誘導陰莖勃起(和打哈欠)的能力與野生型D4受體敲除小鼠相同,並且D3受體拮抗劑能夠消除這些動物的阿撲嗎啡反應(Collins等人,2009),也不能被視為D3受體亞型在D2受體激動劑誘導的陰莖勃起中發揮選擇性作用的決定性作用的決定性證據。撇開物種差異不談,對神經傳導物質/神經勝肽和/或神經傳導物質/神經勝肽受體基因敲除(神經傳導物質/神經勝肽和/或神經傳導物質/神經勝肽受體敲除動物)的研究通常會進一步增加神經傳導物質和/或神經勝肽及其受體在性功能中的作用的確認和複雜性。具體而言,催產素基因敲除產生的催產素敲除小鼠能夠正常交配交媾,彷彿催產素對於交配和交媾並非必要。此外,純合催產素敲除雌性小鼠也表現出正常的交配和分娩,儘管其泌乳功能明顯受損(Nishimori et al., 1996; Young et al., 1996)。編碼神經元一氧化氮合成酶的基因剔除也會產生一氧化氮合成酶敲除小鼠,這些小鼠同樣能夠正常交配和交媾(Huang et al., 1993)。儘管一氧化氮合成酶產生一氧化氮,而一氧化氮是陰莖勃起的主要生理介質之一,在陰莖水平(Burnett等人,1992;Rajfer等人,1992)以及中樞水平(下丘腦室旁核)(Argiolas,1994;Benelli等人,1995;Melis等人,1998)人,上述情況均發揮作用。然而,這些發現可能揭示了生殖生理學的一個重要特徵,即中樞和周邊水平調控生殖生理的系統具有冗餘性。
這種冗餘性無疑具有演化起源,因為它確保了基因傳遞給下一代,從而保障物種的生存。因此,D4受體基因的缺失並不會改變阿撲嗎啡的促勃起作用,這表明D4受體(如催產素和一氧化氮一樣)只是控制勃起功能的眾多介質中的幾種,而不是表明這些受體在控制陰莖勃起和性行為中不起作用。另一項研究(Depoortère等人,2009)最近報道,全身性給予不同品系雄性大鼠D4激動劑未能誘導陰莖勃起。然而,與Collins等人的研究結果相反, (2009),為了使不同 D2 受體亞型在控制陰莖勃起中的作用更加令人費解,該研究還表明,全身性給予假定的選擇性 D3 受體拮抗劑無法降低對阿撲嗎啡促勃起作用更敏感的雄性大鼠品系中阿撲嗎啡誘導的陰莖勃起,而選擇性 D2 類大鼠品系中阿撲嗎啡誘導的陰莖L-741,626(3-[[4-(4-氯苯基)-4-羥基哌啶-1-基]甲基-1H-吲哚)則拮抗了性反應(和打哈欠),這使得作者認為 D2 受體,而不是 D3 和 D4 受體,ortort D2 激動劑誘導的陰莖勃起中的主要作用(Depoère 等,2009)。最後,不能完全排除多巴胺受體激動劑對介導陰莖勃起的催產素能神經元的興奮作用是間接的而不是直接的,例如,是由其他神經遞質神經肽的活性變化介導或影響的,這些神經肽能夠調節室旁核中催產素能神經元的活性。
3.2。 室旁核中的谷氨酸 - 催產素相互作用
下視丘室旁核富含以興奮性胺基酸(如穀胺酸和天門冬胺酸)為神經傳導物質的突觸(Van Den Pol,1991)。該核團中的興奮性胺基酸參與多種功能,包括陰莖勃起和性行為(Roeling等,1991;Melis等,1994b,2000,2004b)。因此,當將 N-甲基-D-天冬胺酸 (NMDA)(一種 NMDA 受體亞型的選擇性激動劑)注射到自由活動的大鼠的室旁核中時,發現它能夠誘導陰莖勃起,而 (±)-_-氨基-3-羥基-5-甲基-異噁唑-4-丙酸 (AMPA)(一種 AMPA 受體 (1,3-13-13-A)(一種 AMPA-13-13-13-13-13)(一種 AMPA-13-13-13-13-13)(一種 AMPA-13-13)(一種反面二烷酸二甲酸)雙烷類的選擇性激動劑(13-C) (ACPD)(一種代謝型受體亞型的選擇性激動劑)則不能(Melis 等,1994b)。 948 MR Melis, A. Argiolas / Neuroscience and Biobehavioral Reviews 35 (2011) 939-955 NMDA 的促勃起作用可被非競爭性 NMDA 受體拮抗劑 (+)MK-801 阻斷(Woodruff 等,1987),該室拮抗劑 (+)MK-801 阻斷(Woodruff 等,1987 年與這些結果一致,在旨在監測海綿體內壓的遙測研究中,當將 NMDA 注射至清醒或麻醉雄性大鼠的室旁核時,其增加海綿體內壓的活性遠高於其他興奮性氨基酸受體亞型的激動劑(Zahran 等,2000;Chen 和 Chang,2003)。
如前文對催產素和多巴胺所述,介導陰莖勃起的NMDA受體可能位於催產素能神經元的胞體中,因為興奮性氨基酸神經末梢會壓迫室旁核中的催產素能神經元胞體(Van Den Pol,1991)。與多巴胺受體激動劑類似,NMDA的促勃起作用顯然是透過活化催產素能神經傳遞介導的,並且可以透過腦室內注射催產素拮抗劑d(CH2)5Tyr(Me)2-Orn8-血管加壓素來消除,但不能透過腦室內注射到室旁核來消除(參見Argiolas和Melis,1995、Melis,1920054)。同樣,NMDA 誘導的催產素能神經傳遞的活化也是一氧化氮合成酶活化的繼發性反應,因為將一氧化氮合酶抑制劑(N-硝基-N-甲基-L-精氨酸甲酯和 N-甲基-硫代-L-瓜氨酸)注入室旁核可以阻止 NMDA 誘導的陰莖勃起,而將參見能誘導神經膜Melis,1995、2004、2005 年及其參考文獻)。至於多巴胺受體激動劑,NMDA誘導的一氧化氮合成酶活化也可能繼發於催產素能細胞體中Ca2+內流的增加,這種增加是透過Ca2+通道偶聯的NMDA受體實現的,這已在多種神經標本中得到證實(綜述見Snyder,1992;Southam和Garthwaite,1993;Schuman和Madison及其參考文獻,394)。一氧化氮反過來活化催產素能神經傳導(見上文)。活化介導陰莖勃起的室旁核催產素能神經元的谷氨酸能投射的起源尚不清楚,儘管一些神經解剖學和電生理學證據表明,它們可能至少部分起源於海馬(Saphier和Feldman,1987;Chen等,1992)。儘管還需要進一步研究來更好地闡明谷氨酸能投射至室旁核的起源,但微透析研究已明確支持谷氨酸在室旁核中參與陰莖勃起和性行為的調控。相應地,當雄性大鼠在無法接觸到的、經雌激素+孕激素預處理的、處於發情期的雌性大鼠面前出現非接觸性勃起時,從其室旁核獲得的透析液中谷氨酸和天冬氨酸的細胞外濃度升高(Melis等,2004b)。這種陰莖勃起也由中樞催產素能傳遞的活化所介導(Melis等,1999a,b)。當允許與發情期雌性大鼠交配時,這種升高更為顯著(Melis等,2004a)。根據陰莖勃起和交配過程中室旁核興奮性氨基酸活性增加的假設,阻斷室旁核中的 NMDA 受體可減少非接觸性勃起和交配行為(交配過程中會發生陰莖勃起),並且這種減少會導致下丘腦核團中一氧化氮產生的增加減少(Melis 等人,2000)。在使用CB1受體拮抗劑SR 141761A阻斷大麻素CB1受體後,室旁核也觀察到了細胞外麩胺酸濃度的增加。此拮抗劑SR 141761A可經由側腦室或直接注射到室旁核,劑量足以誘發陰莖勃起(參見Succu等人,2006;Castelli等人,2007)。谷氨酸濃度的升高導致催產素能神經元胞體內的NO合成酶被激活,從而增加NO的產生。如上所述,NO反過來活化催產素能神經元,進而介導陰莖勃起。與此機制一致,SR 141761A 誘導的陰莖勃起可透過阻斷 NMDA 受體和一氧化氮合酶抑制劑而減少,但可透過阻斷室旁核中的多巴胺或催產素受體而減少,而可透過腦室內註射催產素受體拮抗劑阻斷中樞催產素受體而阻止(Melis 等人,2004a,2004a,2004a,2004a,2004a,2004a,2004a,2004a)。
3.3。 腹側被蓋區的催產素 - 多巴胺相互作用
當以劑量依賴的方式註射到腹側被蓋區的尾部時,催產素誘導陰莖勃起(Melis等,2007)。 單側注射的最低活性劑量是20 ng,而測試的最高劑量是100 ng。 催產素作用是由催產素受體的激活介導的,因為通過在尾側腹側被蓋區域中預先註射催產素拮抗劑d(CH2)5Tyr(Me)2-Orn8-血管緊張素來消除性反應。 這些受體位於多巴胺能神經元的細胞體中,其主要突出於伏隔核的殼。 因此,(1)雙重免疫熒光研究表明,在尾側腹側被蓋區域,催產素纖維與多巴胺能神經元的細胞體緊密接觸,其中大部分為酪氨酸羥化酶的陽性標記並含有先前的逆行示踪劑Fluorogold注射到伏隔核的外殼(Melis等,2007)和(2)腹側被蓋區催產素誘導的陰莖勃起伴隨著從殼中獲得的透析液中細胞外多巴胺濃度的增加而發生。伏隔核(Melis等,2007)。 催產素誘導的陰莖勃起也伴隨著腹側被蓋區域中一氧化氮產生的增加而發生,這兩種反應不僅受到d(CH2)5Tyr(Me)2-Orn8-血管緊張素和一氧化氮合酶抑製劑S-的拮抗作用。甲基硫代-1-瓜氨酸,還有_芋螺毒素,電壓依賴性Ca2 +通道阻斷劑,以及ODQ(1H- [1,2,4]惡二唑[4,3-a]喹喔啉-1-酮),一種強效的鳥苷酸抑製劑環化酶,全部在催產素前的尾側腹側被蓋區域給出(Succu等,2008)。 由於許多被視黃醛能神經纖維接觸的Fluorogold標記的多巴胺能細胞體被發現對尾側腹側被蓋區域中的酪氨酸羥化酶呈陽性,因此也對一氧化氮合酶和鳥苷酸環化酶(Succu等,2008),催產素進行了陽性標記。誘導的陰莖勃起可以通過以下機制介導。 肽對多巴胺能細胞體中的催產素受體的激活增加了多巴胺能神經元細胞體內的Ca2 +流入。 這激活了一氧化氮合成酶,一種Ca2 + - 鈣調蛋白依賴性酶,從而增加了一氧化氮的產生。 一氧化氮反過來激活鳥苷酸環化酶,導致環狀GMP濃度增加。 環狀GMP激活突出到伏隔核的多巴胺能神經元。 注射到尾側腹側被蓋區域的催產素誘導的陰莖勃起中環狀GMP的作用也得到了8-溴環GMP(一種活性磷酸二酯酶抗性環GMP類似物)注射到陰道勃起時誘導陰莖勃起的能力的支持。尾側腹側被蓋區域,並增加來自伏隔核的透析液中的細胞外多巴胺(Succu等,2008; Melis等,2009a)。 這與一氧化氮激活室旁核中的催產素神經元的機制不同,8-溴 - 環GMP在註入該細胞核時不能誘導陰莖勃起(Melis和Argiolas,1995b)(圖2)。 2)。 當注射到尾側腹側被蓋區的催產素誘發陰莖勃起時,伏隔核釋放的多巴胺的作用得到了以下證據的支持:注射到伏隔核的強效多巴胺受體拮抗劑氟哌啶醇可以降低催產素反應(Melis 等人,2007)。至於伏隔核中多巴胺激活的神經通路導致陰莖勃起,這些仍然是未知的。 然而,現有數據表明這些途徑激活了下丘腦室旁核的多巴胺神經傳遞。 因此,催產素誘導的陰莖勃起伴隨著細胞外多巴胺的增加而不僅在 伏隔核,也在室旁核,並被多巴胺受體拮抗劑氟哌啶醇注射到室旁核中(Melis等,2007)。 一個總之,這些結果支持這樣的觀點,即催產素神經元起源於室旁核並投射到尾側腹側被蓋區域,當激活釋放該區域的催產素時,從而激活NO-環狀GMP信號系統, 這反過來激活中腦邊緣多巴胺能神經元 (Melis等,2007,2009a; Succu等,2008)。 在伏隔核中釋放的多巴胺反過來激活神經通路,導致下丘腦多巴胺能神經元的激活,其刺激向腦脊液投射的腦室內催產素神經元介導陰莖勃起。 同時,室旁核釋放的多巴胺也可能激活投射到下丘腦外區域的催產素神經元,如腹側被蓋區,海馬區,杏仁核和其他大腦區域。
如上所述,與此假設一致,向室旁核注射能誘導陰莖勃起的阿撲嗎啡,也會增加伏隔核的細胞外多巴胺濃度;而向腹側被蓋區注射催產素受體拮抗劑d(CH2)5Tyr(Me)2-Orn8-血管加壓素,則會減弱這種效應(Succu等人,2007;Meln8-血管加壓素,則會減弱這種效應(Succu等人,2007;Melisa)。綜上所述,上述神經通路可能構成一個假想的神經環路,該環路涉及多巴胺、催產素和其他神經傳導物質(例如穀氨酸,見下文),不僅影響性功能,還影響性動機和性獎賞(見第4節)。
3.4。 催產素 - 谷氨酸相互作用在海馬腹側下丘腦
催產素在註射到腹側而不是在背側下丘中時以劑量依賴性方式誘導陰莖勃起(Melis等,2009b)。 性反應是由催產素受體的刺激介導的,通過先前註射給予催產素相同部位的d(CH2)5Tyr(Me)2-Orn8-血管緊張素來消除,如在其他腦區域中所見(見上文) 。 關於這些受體的定位,現有數據表明它們位於富含一氧化氮合酶的神經元的細胞體中。
因此,微透析研究表明,催產素誘導的陰莖勃起與腹側下託中一氧化氮的產生增加同時發生,這種增加不僅會被預先註射一氧化氮合酶抑製劑 S-甲基-硫代-L-瓜氨酸和一氧化氮清除劑血紅蛋白所消除,還會被 d(CH2)5Tyr(Me)2-Orn8-血管加壓素所消除這些勃起素的所有治療素(Melis等人,2010)。更重要的是,催產素誘發的陰莖勃起也伴隨著腹側下托細胞外麩胺酸濃度的升高,而這種升高只能被腹側下託內注射的非競爭性NMDA受體拮抗劑(+)MK-801部分拮抗(Melis等人,2010)。綜上所述,這些結果表明,新生成的一氧化氮作為細胞間信使,激活谷氨酸神經傳遞,從而導致陰莖勃起,這可能是透過腹側下托到海馬外腦區的神經傳出投射實現的。與此假設一致,向腹側下托注射NMDA可劑量依賴性地誘導陰莖勃起,而預先向同一部位注射(+)MK-801可完全拮抗此效應,但S-甲基硫代瓜氨酸、血紅蛋白或d(CH2)5Tyr(Me)2-Orn8-血管加壓素則無此作用(Melis等,2010)。至於投射至由腹側下託中興奮性氨基酸(例如穀氨酸)激活的海馬外腦區的神經傳出通路,它們很可能是谷氨酸能通路,正如大多數海馬傳出通路一樣。目前只能認為這些投射調節中腦邊緣多巴胺能神經元的活動,進而調節室旁核中不確定下丘腦多巴胺能神經元的活動,從而激活介導陰莖勃起的催產素能神經元,正如前面討論過的(見上文)。
因此,腹側下托催產素引起的陰莖勃起與伏隔核殼部細胞外多巴胺濃度的增加同時發生,而這種增加,就像陰莖勃起一樣,會被在催產素之前給予腹側下託的d(CH2)5Tyr(Me)2-Orn8-血管加壓素所消除(Melis等人,2009b)。此外,由於腹側下托催產素誘導的陰莖勃起也會被注射到腹側被蓋區(而非伏隔核)的(+)MK-801所抑制(Melis等人,2009b),並且這種抑制與腹側被蓋區(而非伏隔核)細胞外谷氨酸水平的升高同時發生,而這兩種反應均可注射到腹側下托(在註射催產素之前)的d(CH2)5Tyr(Me)-Orn8-血管加壓素所消除(見圖3),因此,中腦邊緣多巴胺能神經元的活化很可能是腹側被蓋區谷氨酸能神經傳導增強的繼發性結果。這提示在腹側被蓋區存在著一種控制陰莖勃起的谷氨酸-多巴胺交互作用。需要進一步研究以確定從下托到腹側被蓋區的促勃起傳出谷氨酸能通路是直接的還是間接的,即透過前額葉皮質或其他腦區(參見 Melis 等人,2009b 及其參考文獻)。由於室旁核也接受來自海馬的谷氨酸能投射(見上文和 Saphier 和 Feldman,1987),而谷氨酸激活室旁核催產素能神經元,包括投射到腹側被蓋區的神經元(見 Argiolas 和 Melis,2005及其參考文獻),而腹側被蓋區的催產素可誘導陰莖勃起並增加中腦邊緣多巴胺能神經元的活性(見上文),因此,人們很容易推測,室旁核催產素能神經元也可能至少部分參與了注射到腹側下託的催產素激活中腦邊緣多巴胺能神經元的過程(見第 4 節)。
4。 結束語
上述研究證實並擴展了早期發現,顯示催產素在雄性大鼠中對陰莖勃起的中央控制起著關鍵作用,其作用機制涉及下丘腦室旁核和脊髓。特別是,最新研究表明,催產素也透過作用於其他腦區,例如腹側被蓋區、腹側下托和杏仁核後內側皮質核,來影響陰莖勃起。
在室旁核水平,最重要的新發現或許是發現室旁核(以及視上核和內側視前區)催產素能神經元的胞體中表達所有D2家族的多巴胺受體(D2、D3和D4)(Baskerville和Douglas,2008;Baskerville等,2009)。這為以下假設提供了強有力的神經解剖學支持:多巴胺和多巴胺受體激動劑可能直接激活參與勃起功能的催產素能神經元,這些神經元不僅投射到脊髓,還投射到下丘腦外的腦區。在這方面,一項重要的發現是,阻斷腰薦脊髓中的催產素受體可以降低多巴胺受體激動劑引起的陰莖海綿體內壓升高(Baskerville等人,2009)。事實上,儘管該證據是在麻醉雄性大鼠中獲得的,但這項發現證實了參與多巴胺受體激動劑誘導陰莖勃起的室旁脊髓催產素下行路徑被活化。然而,催產素能細胞體中多巴胺受體的刺激所誘發的陰莖勃起,是否繼發於D2家族(D2、D3或D4)特定多巴胺受體亞型的激活,或者這些受體亞型是否共同調節勃起反應,以及這種調節方式是否可能因陰莖勃起發生的背景而有所不同,仍有待確定(參見Morel和等人,2004;Enguehard-Gueiffier等人,2006;Melis等人,2006a,b;Löber等人,2009;Collins等人,2009;Depoortère等人,2009;Baskerville等人,2009)。
另一項重要的新發現是催產素不僅注入海馬體的室旁核或CA1區,而且還注入腹側被蓋區,腹側下方和杏仁核的後內側皮質核,從而誘導陰莖勃起。 早期的研究表明,催產素增加了雄性大鼠的自發性陰莖勃起發作,但這些大腦區域沒有進行測試,儘管它們接受了來自室旁核的腰骶脊髓催產素預測。 確實發現催產素能夠增加自發的陰莖勃起發作,這種情況發生在沒有任何性刺激的成年雄性大鼠中,例如那些源自存在可接近或不可接受的接受性(雌激素 - 黃體酮)卵巢切除的雌性大鼠或當注入海馬的室旁核和CA1區時,生殖器的操作,但不是在背側下管,側間隔,尾狀核,內側視前區,腹內側核和視上核(Melis等。 ,1986)。 在所有這些研究中,陰莖勃起通常在陰莖從陰莖鞘中由觀察者出現時計數,該觀察者在實驗期間不直接意識到給定的治療,或者稍後通過用攝像機裝置觀察記錄在錄像帶上的實驗。 每個陰莖勃起事件持續0.5-1分鐘,並且通常伴有陰莖梳理和/或髖關節屈曲。 在這些大鼠中通常不進行實驗以確定性經驗,年齡或這些大鼠是否可以在低或高應答者中分配注射到不同腦區的催產素的勃起效應。 這也適用於大多數關於其他神經肽和增加自發性陰莖勃起發作的藥物的勃起效應的研究,包括多巴胺激動劑,興奮性氨基酸,ACTH-MSH,己糖醇和VGF肽。 然而,這些化合物的前勃起效應已經通過遙測方法反复證實,遙測方法通過自發發生或在通過不同途徑(即全身性,腦室內或室內)給予這些化合物后海綿體內壓力的增加來確定陰莖勃起的發生。在將壓力微傳感器直接植入海綿體後,直接進入特定的腦核(參見Bernabè等,1999)。 在腹側被蓋區域,腹側下丘腦和杏仁核的後內側核也催產素通過作用於催產素受體誘導陰莖勃起。 這導致中腦邊緣多巴胺能神經元的激活,起源於腹側被蓋區並向伏隔核的外殼突出, 通過伏隔核外殼獲得的透析液中細胞外多巴胺濃度的增加和注射到這些下丘腦外區域的肽引起的勃起反應的減少來測量,這是在多巴胺能受體阻斷後發現的。伏隔核(見下文)。 至於通過刺激這些大腦區域中的催產素受體激活的機制,其導致中腦邊緣多巴胺能神經元的激活和陰莖勃起,最明確的是發生在尾側腹側被蓋區域的那些。 實際上,這裡的藥理學和免疫熒光結果表明催產素神經末梢撞擊到伏隔核外殼的多巴胺能神經元的細胞體(Melis等,2007,2009a; Succu等,2008)。 許多這些神經元富含一氧化氮合酶和鳥苷酸環化酶。 這些多巴胺能神經元的細胞體中的催產素受體的刺激引起一氧化氮合酶的活化,導致一氧化氮產生增加。 一氧化氮反過來激活鳥苷酸環化酶,從而增加環狀GMP的濃度, 通過腦內微透析獲得的伏隔核中透析液中細胞外多巴胺的增加來測量,這導致中腦邊緣多巴胺能神經元的激活和伏隔核中多巴胺的釋放(Succu等,2008) )。 在伏隔核中釋放的多巴胺反過來激活導致陰莖勃起的神經通路。 這得到多巴胺受體拮抗劑氟哌啶醇和/或順式氟哌啶醇注射到伏隔核中以減少腹側被蓋區催產素誘導的陰莖勃起的能力的支持(Succu等,2008)。 其中一條前勃起的通路似乎激活了下丘腦多巴胺能神經元,特別是那些向室旁性催產素神經元的細胞體投射的神經元。 實際上,注射到尾側腹側被蓋區域的催產素不僅會增加伏核中的細胞外多巴胺,還會增加室旁核中的細胞外多巴胺,並且室旁核中多巴胺受體的阻斷會顯著減少腹側被蓋區催產素誘導的陰莖勃起(Succu等。 ,2007,2008; Melis等,2007,2009a)。 這些伏核存在多巴胺 - 室旁多巴胺 - 室旁催產素 - 腹側被蓋區催產素 - 多巴胺鏈接 也表明勃腦前劑量的阿撲嗎啡和D4受體激動劑PD 168077注射到室旁核以增加伏隔核殼中的細胞外多巴胺的能力(Succu等,2007),在給予腹側被蓋區域的d(CH2)5Tyr(Me)-Orn8-血管緊張素被消除(Melis等,2009a,也參見下文)。 然而,需要進一步的工作來確定連接伏隔核與下丘腦多巴胺能係統的神經通路。
當注射到腹側下託或杏仁核的後內側核中時,催產素誘導陰莖勃起並激活中腦邊緣多巴胺能神經元的機制目前僅部分被理解。 在這些區域中,催產素激活其自身的受體,其導致一氧化氮合酶的活化,從而增加一氧化氮的產生。 一氧化氮反過來激活未知的傳出預測,這顯然增加了腹側被蓋區域的谷氨酸能神經傳遞。 谷氨酸然後刺激中腦邊緣多巴胺能神經元導致陰莖勃起。這一假設主要得益於注射到腹側下丘腦的催產素增加腹側被蓋區域的細胞外谷氨酸的能力(圖2)。 3)和非競爭性NMDA受體拮抗劑(+)MK-801注射到腹側被蓋區域,但不是伏隔核,以減少注射到腹側下腔或後內側核中的催產素誘導的陰莖勃起杏仁核(Melis等,2009b)。 目前,更多細節可用於腹側下丘腦催產素誘導的陰莖勃起。 在這裡,催產素誘導的陰莖勃起似乎繼發於位於含有一氧化氮合酶的神經元的細胞體中的催產素受體的激活。 這導致一氧化氮的產生增加,其通過充當細胞間信使而激活谷氨酸能神經傳遞,其機制類似於長期增強所描述的機制(參見Snyder,1992; Southam和Garthwaite,1993; Schuman和Madison,2004) 。 與此假設一致的是,催產素誘導的陰莖勃起伴隨著來自腹側下丘腦的透析液中細胞外谷氨酸的增加,並且通過NMDA刺激腹側下丘腦中的興奮性氨基酸受體,誘導陰莖勃起。 如上所述,谷氨酸反過來激活神經傳出投射,導致腹側被蓋區域的中腦邊緣多巴胺能神經元的激活。 如果這些機制也在杏仁核的後內側核中有效,目前尚不清楚。 此外,有必要進一步研究證明(1)腹側下丘腦和杏仁核後內側核中的催產素神經末梢和受體位於含有一氧化氮合成酶(2)的神經細胞體中,如果這些神經元最終在興奮性氨基酸(谷氨酸能)突觸和(3)的控制下,以鑑定由一氧化氮激活的信號系統。 在這方面,值得注意的是,催產素能夠增加尾側腹側被蓋區域中多巴胺能神經元細胞體內的一氧化氮合酶活性以及腹側下丘腦和杏仁核後內側核中尚未知的神經元的能力。催產素在室旁核中的催產素神經元的細胞體中激活一氧化氮合酶的能力(Melis等,1997)。 然而,在腹側被蓋區域中,多巴胺能神經元細胞體中一氧化氮的產生增加導致通過激活鳥苷酸環化酶和增加環狀GMP激活這些神經元,這在室旁核中不會發生。 因此,注射到室旁核中的8-溴 - 環GMP不會誘導陰莖勃起,而當注射到腹側被蓋區時它會這樣做。 然後,另一種不同於一氧化氮循環GMP系統的信號傳導途徑涉及內源性和/或外源性一氧化氮介導陰莖勃起的催產素神經元激活的室旁水平(Melis和Argiolas,1995b; Melis等,1997)(圖。 1)。 另一方面,腹側被蓋區域的環狀GMP似乎在中腦邊緣多巴胺能神經元的激活和在從雄性大鼠伏核的殼體獲得的透析液中發生的細胞外多巴胺的增加中起關鍵作用。選擇用於顯示或不顯示非接觸性陰莖勃起,當存在不可接受的卵巢切除接受(雌激素+孕酮處理)雌性大鼠時。 在這些實驗條件下,在顯示非接觸性陰莖勃起的雄性大鼠中,如預期的那樣發現細胞外多巴胺濃度增加,並且這種增加進一步增加,儘管只是適度地,通過給予尾側腹側被蓋區域的磷酸二酯酶抑製劑(Sanna等)。 al。,2009)。 相反,在不表現出非接觸性勃起的雄性大鼠中,伏隔核中未發現明顯的細胞外多巴胺增加,而向尾側腹被蓋區給予磷酸二酯酶抑制劑後,細胞外多巴胺濃度顯著增加,並觀察到非接觸性勃起(Sanna 等人,2009)。
催產素注射到腹側被蓋區,腹側下方和杏仁核後內側皮質核中的能力,以及注射到室旁核的多巴胺激動劑,誘導陰莖勃起和激活中腦邊緣多巴胺能神經元的能力值得一些評論。 首先,當在生理環境中發生陰莖勃起時,例如在交配期間(當發生陰莖勃起時)或在非接觸性陰莖勃起期間,可以操作類似於上述回憶的機制。 這些勃起是由信息素介導的陰莖勃起與藥物或催產素引起的陰莖勃起無法區分,當性功能強大的雄性大鼠被置於難以接受的接受性(卵巢切除的雌激素+孕激素)雌性大鼠的存在時發生,並且被認為是性的指標。喚醒(Sachs,1997,2007)。 實際上,儘管這些結果並未證明這些區域的催產素在生理環境中或藥物給藥後的陰莖勃起中發揮作用,但它們為早期發現增加了進一步的強度,表明這些腦區屬於催產素集中起作用的區域。不僅可以在勃起前藥物後看到自發的陰莖勃起事件,而且還可以改善男性(和女性)的性行為(參見Argiolas和Melis,2004及其中的參考文獻)。 因此,用前勃起劑量的阿撲嗎啡(一種經典的多巴胺激動劑(Melis等,1990)和d(CH2)5Tyr(Me)-Orn8-血管緊張素)治療的雄性大鼠的海馬中催產素濃度增加,其阻斷催產素受體,不僅在損害交配行為方面非常有效(Argiolas等,1987a),而且在性功能強大的雄性大鼠中,阿樸嗎啡對男性交配行為(Argiolas等,1987b)的促進作用,其中陰莖勃起發生。 d(CH2)5Tyr(Me)-Orn8-血管緊張素在減少性有效雄性大鼠的非接觸性勃起方面也非常有效,當以納克量給予側腦室時,但不能進入PVN(Melis等,1999a)。
其次,中腦邊緣多巴胺能神經元在食物、水和性活動等自然強化刺激的動機和獎賞特性中發揮關鍵作用(Fibiger和Phillips,1988;Wise和Rompre,1989;Everitt,1990)。特別是,人們認為這些神經元釋放的多巴胺介導了自然刺激的動機方面向目標導向行為的轉化,例如在性活動中,尋找性伴侶和進行性交以獲得獎賞和滿足感(Goto和Grace,2005)。因此,在性成熟的雄性大鼠接觸到無法接近的、卵巢切除的、雌激素 + 孕激素預處理的、處於發情期的雌性大鼠時,其伏隔核透析液中的細胞外多巴胺濃度會增加;當允許雄性大鼠與處於發情期的雌性大鼠交配時,這種增加甚至更高(Pfaus 和 Everitt,1995)。
第三,目前的結果支持這樣的假設:神經迴路直接或間接地(通過腹側下托和/或扁桃體的後內側皮質核)和伏隔核連接室旁核和腹側被蓋區,並從此通過未知再次回到室旁核以控制投射到脊髓的催產素神經元活動陰莖勃起和投射到腹側被蓋區域,腹側下棘和杏仁核後內側皮質核的催產素神經元的活動,以這種方式調節中腦邊緣多巴胺能神經元的活性(圖4)。 這種複雜的神經迴路可能在神經活動的整合中起作用,所述神經活動涉及在生理環境中控制男性性行為的完成(勃起射精)和預期(激勵和獎勵)方面。 實際上,當非接觸性勃起發生時,伏隔核(Pfaus和Everitt,1995)和性功能強大的雄性大鼠室旁核中的細胞外多巴胺增加,當發生非接觸性勃起時,甚至更多,當允許交配時,例如,當發生陰莖勃起時(Melis等,2003)。 因此,儘管需要進一步的研究來闡明內源性催產素在腹側被蓋區,腹側關節和杏仁核在非接觸性勃起和性行為中的作用,但可以合理地假設這個假設的神經迴路,同時有助於性行為的完善方面,同時也可以激活中腦邊緣多巴胺能係統,提供神經基質來解釋性活動的有益特性(Everitt,1990; Pfaus和Everitt,1995)。 在這方面,值得注意的是,注射到腹側被蓋區域的催產素激活的中腦邊緣多巴胺能係統與阿片類藥物,大麻素,安非他明,可卡因和酒精等濫用藥物(Tanda等,1997)相同,並且發現催產素能夠降低對可卡因,嗎啡,酒精和大麻素的耐受性和依賴性(Kovacs等,1998; Cui等,2001)。 總之,似乎催產素不僅在腹側被蓋區釋放,而且在腹側下丘腦和杏仁核的後內側皮質核中釋放,可以激活中腦邊緣多巴胺能神經元,這可能與性活動的有益和有益效果有關。 。 中腦邊緣多巴胺能神經元的激活可以通過中腦邊緣多巴胺能神經元的細胞體中的催產素受體直接激活,或者通過腹側被蓋區域中谷氨酸神經傳遞的激活而間接激活。
在伏核中釋放的多巴胺反過來調節室旁核中的下丘腦多巴胺能神經元的活動,導致陰莖勃起(通過激活投射到脊髓的催產素神經元),或性動機和獎勵(通過激活催產素)神經元突出到腹側被蓋區,腹側下方或杏仁核的後內側皮質核。 當在生理環境中發生陰莖勃起時(例如,非接觸性勃起和交配)(Succu等,2007; Melis等,2003,2007),多巴胺也在伏隔核殼和室旁核中釋放,它是可能中樞催產素神經元參與介導中腦邊緣和下丘腦多巴胺能係統之間相互作用的神經迴路。 這些神經迴路不僅可以在性行為的完成階段(例如陰莖勃起和交配)中發揮作用,還可以在性動機,性喚起和性回報中發揮作用。
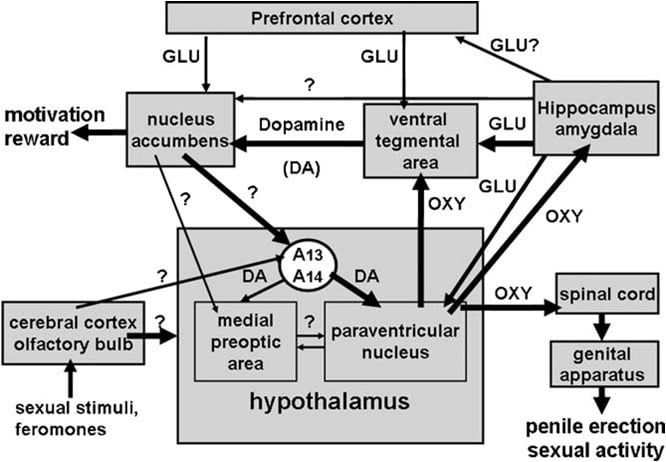
根據本章及先前研究結果,本文提出了一種假設的神經迴路示意圖,該迴路涉及催產素對性動機、性獎勵和性表現的影響。起源於室旁核並投射至脊髓的催產素能神經元,在多巴胺和谷氨酸(以及其他神經傳導物質和/或神經肽)等物質的活化下,可透過活化投射至脊髓的催產素能神經元來促進陰莖勃起和性表現。室旁核的多巴胺和麩胺酸(以及其他神經傳導物質和神經勝肽)還能活化投射至腹側被蓋區的催產素能神經元,進而活化投射至伏隔核的中腦邊緣多巴胺能神經元,最終調節性動機和性獎勵。伏隔核釋放的多巴胺會活化一些尚未明確的神經通路,進而增強下視丘不確定多巴胺能神經元(起源於Dahlstrom和Fuxe定義的A13-A14神經元群)的活性,這些神經元會與其他神經元共同作用於催產素能神經元,包括投射到脊髓的神經元,最終導致陰莖勃起。此外,注射到尾側腹側被蓋區、腹側下托和杏仁核的催產素也能活化這條神經迴路。這些腦區也接受來自室旁核的催產素能支配,可能透過直接或間接的谷氨酸能傳出路徑到達腹側被蓋區,從而調節性動機和陰莖勃起。最後,上述迴路也可能被性刺激和信息素激活,因為在信息素介導的非接觸性勃起和交配過程中,室旁核(以及內側視前區)中的細胞外多巴胺和谷氨酸會增加(有關適當的參考文獻,請參見參考文獻列表)。
致謝這項工作得到了意大利大學和AA和MRM研究部門的資助。
參考
Andersson,KE,2001。 陰莖勃起的藥理學。 藥理學。 牧師 53,417-450。 Argiolas,A.,1994。 一氧化氮是陰莖勃起的中樞介質。 神經藥理學33,1339-1344。 Argiolas,A.,1999。 神經肽和性行為。 神經科學。 Biobehav。 牧師 23,1127-1142。 Argiolas,A.,Gessa,GL,1991。 催產素的中心功能。 神經科學。 Biobehav。 牧師 15,217-231。 Argiolas,A.,Melis,MR,1995。 陰莖勃起的神經調節:概述神經遞質和神經肽的作用。 PROG。 神經生物學。 47,235-255。 Argiolas,A.,Melis,MR,2004。 催產素和室旁核在雄性哺乳動物性行為中的作用。 生理學。 Behav。 83,309-317。 Argiolas,A.,Melis,MR,2005。 陰莖勃起的中樞控制:下丘腦室旁核的作用。 PROG。 神經生物學。 76,1-21。 Argiolas,A.,Collu,M.,Gessa,GL,Melis,MR,Serra,G.,1988。 催產素拮抗劑d(CH2)5Tyr(Me)-Orn8-血管緊張素拮抗大鼠中的雄性交配行為。 歐元。 J. 藥理學。 149,389-392。 Argiolas,A.,Collu,M.,D'Aquila,P.,Gessa,GL,Melis,MR,Serra,G.,1989。 在大鼠中通過催產素拮抗劑d(CH2)5Tyr(Me)-Orn8-血管緊張素來預防阿撲嗎啡刺激男性交配行為。 藥理學。 生物化學。 Behav。 33,81-83。 Argiolas,A.,Melis,MR,Gessa,GL,1985。 腦室內催產素誘導大鼠打哈欠和陰莖勃起。 歐元。 J. 藥理學。 117,395-396。 Argiolas,A.,Melis,MR,Gessa,GL,1986。 催產素:一種非常有效的陰莖勃起和雄性大鼠打哈欠誘導劑。 歐元。 J. 藥理學。 130,265-272。 Argiolas,A.,Melis,MR,Mauri,A.,Gessa,GL,1987a。 室旁核損傷可防止阿撲嗎啡和催產素引起的打哈欠和陰莖勃起,但不能通過大鼠的ACTH引起。 Brain Res。 421,349-352。 Argiolas,A.,Melis,MR,Vargiu,L.,Mauri,A.,Gessa,GL,1987b。 d(CH2)5Tyr(Me)-Orn8-血管緊張素,一種有效的催產素拮抗劑,可拮抗由催產素和阿撲嗎啡誘導的陰莖勃起和打哈欠,但ACTH 1-24不能。 歐元。 J. 藥理學。 134,221-224。 Argiolas,A.,Melis,MR,Stancampiano,R.,Gessa,GL,1990。 _-芋螺毒素可預防阿樸嗎啡和催產素誘導的陰莖勃起和雄性大鼠的打哈欠。 藥理學。 生物化學。 Behav。 37,253-257。 Arletti,R.,Bertolini,A.,1985。 催產素刺激雌性大鼠的脊柱前凸行為。 神經肽6,247-255。 Arletti,R.,Bazzani,C.,Castelli,M.,Bertolini,A.,1985。 催產素可改善大鼠的雄性交配能力。 HORM。 Behav。 19,14-20。 Arletti,R.,Benelli,A.,Bertolini,A.,1990。 催產素刺激衰老雄性大鼠的性行為。 歐元。 J. 藥理學。 179,377-382。 Arletti,R.,Calzà,L.,Giardino,L.,Benelli,A.,Cavazzutti,E.,Bertolini,A.,1997。 性陽痿與催產素的產生減少和下丘腦室旁核中阿片肽的產生增加有關。 神經科學。 快報。 233,65-68。 Bancila,M.,Giuliano,F.,Rampin,O.,Mailly,P.,Brisorgueil,MJ,Clas,A.,Verge,D.,2002。 從下丘腦的室旁核直接投射到原發性細胞核的假定5-羥色胺能神經元的證據涉及控制大鼠的勃起。 歐元。 J. 神經科學。 16,1240-1249。 Burnett,AL,Lowenstein,CJ,Bredt,DS,Chang,TSK,Snyder,SH,1992。 一氧化氮:陰莖勃起的生理介質。 科學257,401-403。 Baskerville,TA,Douglas,AJ,2008。 多巴胺和催產素之間的相互作用控制性行為。 PROG。 Brain Res。 170,277-289。 Baskerville,TA,Allard,J.,Wayman,C.,Douglas,AJ,2009。 陰莖勃起中的多巴胺 - 催產素相互作用。 歐元。 J. 神經科學。 30,2151-2164。 Benelli,A.,Bertolini,A.,Poggioli,R.,Cavazzutti,E.,Calzà,L.,Giardino,L.,Arletti,R.,1995。 一氧化氮參與大鼠的男性性行為。 歐元。 J. 藥理學。 294,505-510。 Bernabè,J.,Rampin,O。,Sachs,BD,Giuliano,F.,1999。 大鼠勃起期間的海綿體內壓力:基於遙測記錄的綜合方法。 上午。 J. 生理學。 276,R441-R449。 Bitner,RS,Nikkel,AL,Otte,S.,Martino,B.,Barlow,EH,Bhatia,P.,Stewart,AO,Brioni,JD,Decker,MW,Moreland,RB,2006。 大鼠下丘腦室旁核中的多巴胺D4受體信號傳導:涉及立即早期基因誘導和絲裂原活化蛋白激酶磷酸化的天然偶聯的證據。 神經藥理學50,521-531。 Brioni,JD,Moreland,RB,Cowart,M.,Hsieh,GC,Stewart,AO,Hedlund,P.,Donnelly-Roberts,DL,Nakane,M.,Lynch 3rd。,J.,Kolasa,T.,Polakowski ,JS,Osinski,MA,Marsh,K.,Andersson,KE,Sullivan,JP,2004。 ABT-4激活多巴胺D724受體誘導大鼠陰莖勃起。 PROC。 國家科。 科學院。 科學。 美國 101,6758-6763。 Buijs,RM,1978。 大鼠體內和體外的下丘腦血管加壓素和催產素途徑。 細胞組織研究 192,423-435。 Buijs,RM,Geffard,M.,Pool,CW,Hoorneman,EMD,1984。 視上核和室旁核的多巴胺能神經支配。 光學和電子顯微鏡研究。 Brain Res。 323,65-72。 Caldwell,JD,Prange,AJ,Pedersen,CA,1986。 催產素促進雌激素處理的雌性大鼠的性接受性。 神經肽7,175-189。 Cameron,JL,Pomerantz,SM,Layden,LM,Amico,JA,1992。 阿撲嗎啡和D2受體激動劑對雄性和雌性猴子血漿中催產素濃度的多巴胺能刺激。 J. 臨床。 內分泌學。 代謝。 75,855-860。 Canteras,NS,Simerly,RB,Swanson,LW,1995。 組織杏仁核內側核的投射:大鼠的PHAL研究。 J. 比較。 神經病學。 360,213-245。 Carmichael,MS,Humbert,R.,Dixen,J.,Palmisano,G.,Greeleaf,W.,Davidson,JM,1987。 血漿催產素在人類性反應中增加。 J. 臨床。 內分泌學。 代謝。 64,27-31。 卡特,CS,1992。 催產素和性行為。 神經科學。 Biobehav。 牧師 16,131-144。 Carter,CS,Lederhendler,II,Kirkpatrick,B.,1997。 紐約科學院年刊的交互式神經生物學,第一卷。 807 紐約科學院,紐約。 Castelli,MP,Piras,AP,Melis,T.,Succu,S.,Sanna,F.,Melis,MR,Collu,S.,Ennas,MG,Diaz,G.,Mackie,K.,Argiolas,A。 ,2007。 室旁核中的大麻素CB1受體和陰莖勃起的中樞控制:免疫細胞化學,放射自顯影和行為研究。 神經科學147,197-206。 Chen,KK,Chang,LS,2003。 興奮性氨基酸受體激動劑對大鼠下丘腦室旁核給藥後陰莖勃起的影響。 J. Urol。 62,575-580。 Chen,KK,Chan,JYH,Chang,LS,Chen,MT,Chang,SHH,1992。 在大鼠中激活海馬結構後誘導陰莖勃起。 神經科學。 快報。 141,218-222。 Chen,KK,Chan,JYH,Chang,LS,1999。 下丘腦室旁核多巴胺能神經傳遞在中樞調節大鼠陰莖勃起中的作用。 J. Urol。 162,237-242。 Collins,GT,Truccone,A.,Haji-Abdi,F.,Newman,AH,Grundt,P.,Rice,KC,Husbands,SM,Greedy,BM,Enguehard-Gueiffer,C.,Gueiffer,A.,Chen ,J.,Wang,S.,Katz,JL,Grandy,DK,Sunahara,RK,Woods,JH,2009。 多巴胺D2樣激動劑的促勃起作用由大鼠和小鼠中的D3受體介導。 J. 藥理學。 進出口。 療法。 329,210-217。 Coolen,LM,Allard,J.,Truitt,WA,McKenna,KE,2004。 射精的中樞調節。 生理學。 Behav。 83,203-215。 Cui,SS,Bowen,RC,Gu,GB,Hannesson,BK,Yu,PH,Zhang,X.,2001。 通過鋰預防大麻素戒斷綜合徵:參與催產素神經元激活。 J. 神經科學。 21,9867-9876。 Dahlstrom,A.,Fuxe,K.,1964。 中樞神經系統中含有單胺的神經元存在的證據。 I. 在腦幹神經元的細胞體中證明單胺。 Acta Physiol。 SCAND。 62(Suppl。 232),1-54。 Depoortère,R.,Bardin,L.,Rodrigues,M.,Abrial,E.,Aliaga,M.,Newman-Tancredi,A.,2009。 在大鼠中由多巴胺D2樣受體激動劑誘導的陰莖勃起和打哈欠:多巴胺D2的應變和貢獻的影響,但不影響D3和D4受體。 Behav。 藥理學。 20,303-311。 Domes,G.,Heinrichs,M.,Buchel,C.,Braus,DF,Herpertz,SC,2007。 催產素可以減弱杏仁核對情緒面孔的反應,無論其價態如何。 生物學。 精神病學62,11871190。 Dominguez,J.,Riolo,JV,Xu,Z.,Hull,ME,2001。 內側杏仁核對交配和內側視前多巴胺釋放的調節作用。 J. 神經科學。 21,349-355。 Donaldson,ZR,Young,LJ,2009。 催產素,血管加壓素和社會性的神經遺傳學。 科學322,900-904。 Eaton,RG,Markowski,VF,Lumley,LA,Thompson,JT,Moses,J.,Hull,EM,1991。 室旁核中的D2受體調節雄性大鼠的生殖器反應和交配。 藥理學。 生物化學。 Behav。 39,177-181。 Ebner,K.,Bosch,OJ,Krömer,SA,Singewald,N.,Neumann,ID,2005。 大鼠中樞杏仁核中催產素的釋放調節應激反應行為和興奮性氨基酸的釋放。 神經精神藥理學30,223-230。 Enguehard-Gueiffier,C.,Hübner,H.,El Hakmaoui,A.,Allouchi,H.,Gmeiner,P.,Argiolas,A.,Melis,MR,Gueiffier,A.,2006。 2 - [(4-苯基哌嗪-1-基)甲基]咪唑並(二)吖嗪作為選擇性D4-配體。 通過2- [4-(2-甲氧基苯基)哌嗪-1-基甲基]咪唑並[1,2-a]吡啶(PIP3EA)誘導陰莖勃起,其是一種有效的選擇性D4激動劑。 J. 醫學。 化學。 49,3938-3947。 Everitt,BJ,1990。 性動機:對雄性大鼠的食慾和交配反應機制的神經和行為分析。 神經科學。 Biobehav。 牧師 14,217-232。 Fibiger,HC,Phillips,AG,1988。 Mesocorticolimbic多巴胺系統和獎勵。 安。 N. Y. 科學院。 科學。 5,206-215。 法國,SJ,Totterdell,S.,2003。 個別伏隔核 - 投射神經元接受大鼠的基底外側杏仁核和腹側近端傳入神經。 神經科學119,19-31。 954 MR 梅利斯,A。 Argiolas / Neuroscience and Biobehavioral Reviews 35(2011)939-955 Freund-Mercier,MJ,Richard,P.,1981。 腦室內註射催產素對大鼠乳汁排出反射的興奮作用。 神經科學。 快報。 23,193-198。 Freund-Mercier,MJ,Richard,P.,1984。 催產素在催乳過程中促進控制催產素神經元的電生理學證據。 J. 生理學。 (Lond。)352,447-466。 Freund-Mercier,MJ,Stoeckel,ME,1995。 催產素神經元上的Somatodendritic自身受體。 在:Ivell,R.,Russel,JA (編輯),催產素,細胞和分子方法的醫學和研究。 進階 進出口。 醫學。 Biol。,365。 Plenum Press,紐約和倫敦,pp。 185-194。 Freund-Mercier,MJ,Stoeckel,ME,Palacios,JM,Pazos,JM,Richard,PH,Porte,A.,1987。 通過放射自顯影研究Wistar大鼠腦內3H催產素結合位點的藥理學特徵和解剖學分佈。 神經科學20,599-614。 Giuliano,F.,Rampin,O.,2000。 中央控制陰莖勃起。 神經科學。 Biobehav。 牧師 24,517-533。 Giuliano,F.,Allard,J.,2001。 多巴胺和性功能。 詮釋。 J. 陽痿 13(Suppl。 3),18-28。 Giuliano,F.,Rampin,O.,2004。 神經控制勃起。 生理學。 Behav。 83,189-201。 Giuliano,F.,Bernabè,J.,McKenna,KE,Longueville,F.,Rampin,O.,2001。 催產素對麻醉大鼠的脊髓前腦刺激作用。 Am J. 生理學。 雷古爾。 INTEG。 比較。 生理學。 280,R1870-R1877。 Goto,Y.,Grace,AA,2005。 在目標導向行為中多巴胺能調節伏隔核的邊緣和皮質驅動。 納特。 神經科學。 8,805-812。 Hawthorn,J.,Ang,VT,Jenkins,JS,1985。 下丘腦室旁核,視上核和視交叉上核病變對大鼠腦和脊髓中加壓素和催產素的影響。 Brain Res。 346,51-57。 Heier,RF,Dolak,LA,Duncan,JN,Hyslop,DK,Lipton,MF,Martin,LJ,Mauragis,MA,Piercey,MF,Nichols,NF,Schreur,PJ,Smith,MW,Moon,MW,1997。 (R)-5,6-二氫-N,N-二甲基-4H-咪唑並[4,5,1-ij]喹啉-5-胺)及其代謝物的合成和生物活性。 J. 醫學。 化學。 40,639-646。 Hsieh,GC,Hollingsworth,PR,Martino,B.,Chang,R.,Terranova,MA,O'Neill,AB,Lynch,JJ,Moreland,RB,Donnelly-Roberts,DL,Kolasa,T.,Mikusa,JP ,麥維,JM,馬什,KC,沙利文,JP,布里奧尼,法學博士,2004年。 調節清醒大鼠陰莖勃起的中樞機制:多巴胺能係統與阿撲嗎啡的勃起效應有關。 J. 藥理學。 進出口。 療法。 308,330-338。 Huang,PL,Dawson,TM,Bredt,DS,Snyder,SH,Fishman,MC,1993。 靶向破壞神經元型一氧化氮合酶基因。 Cell 75,1273-1286。 Huber,D.,Veinante,P.,Stoop,R.,2005。 血管加壓素和催產素激發中央杏仁核中不同的神經元群。 科學308,245-248。 Hull,EM,Warner,RK,Bazzett,TJ,Eaton,RC,Thompson,JT,1989。 內側視前區的D2 / D1比率影響雄性大鼠的交配。 J. 藥理學。 進出口。 療法。 251,422-427。 Hull,EM,Du,J.,Lorrain,DS,Matuszewich,L.,1995。 內側視前區的細胞外多巴胺:對性交動和交配激素控制的影響。 J. 神經科學。 15,7465-7471。 Hull,EM,Meisel,RL,Sachs,BD,2002。 男性性行為。 在:Pfaff,DW,Arnold,AP,Etgen,AM,Fahrbach,SE,Rubin,RT (編輯),激素,大腦和行為。 學術出版社,紐約,pp。 3-137。 Hurlemann,R.,Patin,A.,Onur,OA,Cohen,MX,Baumgartner,T.,Metzler,S.,Dziobek,I.,Gallinat,J.,Wagner,M.,Maier,W.,Kendrick, KM,2010。 催產素可增強杏仁核依賴性,社會強化學習和人類情感共鳴。 J. 神經科學。 30,4999-5007。 Ivell,R.,Russel,JA,1995。 催產素:醫學和研究中的細胞和分子方法。 實驗醫學和生物學進展,第一卷。 395 Plenum出版社,紐約。 Kelley,AE,Domesick,VB,1982。 從海馬結構到大鼠伏隔核的投射分佈:順行 - 逆行 - 辣根過氧化物酶研究。 神經科學7,2321-2335。 Kimura,Y.,Naitou,Y.,Wanibuchi,F.,Yamaguchi,T.,2008。 5-HT(2C)受體激活是阿撲嗎啡,催產素和美拉諾坦-II在大鼠中的勃起效應的常見機制。 歐元。 J. 藥理學。 589,157-162。 Kondo,Y.,Sachs,BD,Sakuma,Y.,1998。 內側杏仁核在動情雌性遠程刺激引起的大鼠陰莖勃起中的重要性。 Behav。 Brain Res。 91,215-222。 Kovacs,GL,Sarnyai,Z.,Szabo,G.,1998。 催產素和成癮:評論。 精神神經內分泌學23,945-962。 Lee,HJ,Macbeth,AH,Pagani,JH,Scott Young 3rd,W.,2009。 催產素:生命的偉大促進者。 PROG。 神經生物學。 88,127-151。 Lindvall,O.,Bjorklund,A.,Skagerberg,G.,1984。 大鼠二尖瓣和端腦中多巴胺末端系統的選擇性化學演示:下丘腦神經分泌核多巴胺能神經支配的新證據。 Brain Res。 306,19-30。 Liu,YC,Salamone,JD,Sachs,BD,1997。 男性大鼠下丘腦室旁核損傷後的性反應受損。 Behav。 神經科學。 111,1361-1367。 Löber,S.,Tschammer,N.,Hübner,H.,Melis,MR,Argiolas,A.,Gmeiner,P.,2009。 作為新型生物電子等排體的azulene框架:設計誘導陰莖勃起的強效多巴胺D4受體配體。 化學。 醫學。 化學。 4,325-328。 McCleskey,EW,Fox,AP,Feldman,DH,Cruz,LJ,Olivera,BM,Tsien,RW,Yoshikami,D.,1987。 _-芋螺毒素:直接和持續阻斷神經元中特定類型的鈣通道而非肌肉。 普羅特。 納特。 科學院。 科學。 美國 84,4327-4331。 McKenna,KE,2000。 關於組織中樞神經系統控制陰莖勃起的一些建議。 神經科學。 Biobehav。 牧師 24,535-540。 Marson,L.,McKenna,KE,1992。 5-羥色胺在下行抑制脊柱性反射中的作用。 進出口。 Brain Res。 88,313-318。 Marson,L.,McKenna,KE,1996。 參與控制坐骨海綿體肌和球海綿體肌的CNS細胞群:使用偽狂犬病病毒的跨神經元追踪研究。 J. 比較。 神經病學。 374,161-179。 Meisel,RL,Sachs,BD,1994。 男性性行為的生理學。 在:Knobil,E.,Neil,J。 (編輯),生殖生理學,第一卷。 2,第二版。 Raven Press,紐約,pp。 3-96。 Melin,P.,Kihlstrom,JE,1963。 催產素對雄兔性行為的影響。 內分泌學73,433-435。 Melis,MR,Argiolas,A.,1995a。 多巴胺和性行為。 神經科學。 Biobehav。 牧師 19,19-38。 Melis,MR,Argiolas,A.,1995b。 當注射到雄性大鼠的中樞神經系統中時,一氧化氮供體誘導陰莖勃起和打哈欠。 歐元。 J. 藥理學。 294,1-9。 Melis,MR,Argiolas,A.,2003。 中樞性催產素神經傳遞:用於治療致癌性勃起功能障礙的藥物靶標。 CURR。 藥物靶向4,55-66。 Melis,MR,Argiolas,A.,Gessa,GL,1986。 催產素引起的打哈欠和陰莖勃起:大腦中的作用部位。 Brain Res。 398,259-265。 Melis,MR,Argiolas,A.,Gessa,GL,1987。 阿撲嗎啡引起的打哈欠和陰莖勃起:大腦中的作用部位。 Brain Res。 415,98-104。 Melis,MR,Argiolas,A.,Gessa,GL,1989a。 阿撲嗎啡增加大鼠的血漿催產素水平。 神經科學。 快報。 98,351-355。 Melis,MR,Argiolas,A.,Gessa,GL,1989b。 阿撲嗎啡通過在中樞神經系統釋放催產素誘導陰莖勃起和打哈欠的證據。 歐元。 J. Phamacol。 164,565-570。 Melis,MR,Argiolas,A.,Stancampiano,R.,Gessa,GL,1990。 阿撲嗎啡對雄性大鼠不同腦區和血漿中催產素濃度的影響。 歐元。 J. 藥理學。 182,101-107。 Melis,MR,Mauri,A.,Argiolas,A.,1994a。 阿撲嗎啡和催產素誘導的陰莖勃起和完整和閹割雄性大鼠的打哈欠:性類固醇的作用。 神經內分泌學59,349-354。 Melis,MR,Stancampiano,R.,Argiolas,A.,1994b。 由腦室NMDA注射誘導的陰莖勃起和打哈欠由催產素介導。 藥理學。 生物化學。 Behav。 48,203-207。 Melis,MR,Stancampiano,R.,Argiolas,A.,1994c。 通過NG-硝基-1-精氨酸甲酯預防阿撲嗎啡和催產素誘導的陰莖勃起和打哈欠:大腦中的作用部位。 藥理學。 生物化學。 Behav。 48,799-804。 Melis,MR,Succu,S.,Argiolas,A.,1996。 多巴胺受體激動劑增加下丘腦室旁核中的一氧化氮產生:與陰莖勃起和打哈欠相關。 歐元。 J. 神經科學。 8,2056-2063。 Melis,MR,Succu,S.,Iannucci,U.,Argiolas,A.,1997。 催產素增加下丘腦室旁核中的一氧化氮產生:與陰莖勃起和打哈欠相關。 註冊。 肽69,105-112。 Melis,MR,Succu,S.,Mauri,A.,Argiolas,A.,1998。 在非接觸性陰莖勃起和交配期間,雄性大鼠下丘腦室旁核中的一氧化氮產生增加。 歐元。 J. 神經科學。 10,1968-1974。 Melis,MR,Spano,MS,Succu,S.,Argiolas,A.,1999a。 催產素拮抗劑d(CH2)5Tyr(Me)2-Orn8-血管緊張素減少雄性大鼠的非接觸性陰莖勃起。 神經科學。 快報。 265,171-174。 Melis,MR,Succu,S.,Spano,MS,Argiolas,A.,1999b。 注射到下丘腦室旁核的嗎啡可以防止非接觸性勃起並損害交配:一氧化氮的參與。 歐元。 J. 神經科學。 11,1857-1864。 Melis,MR,Spano,MS,Succu,S.,Argiolas,A.,2000。 興奮性氨基酸,多巴胺和催產素受體拮抗劑對雄性大鼠非接觸性陰莖勃起和室旁一氧化氮生成的影響。 Behav。 神經科學。 114,849-857。 Melis,MR,Succu,S.,Mascia,MS,Cortis,L.,Argiolas,A.,2003。 在性活動期間,雄性大鼠的室旁核中的細胞外多巴胺增加。 歐元。 J. 神經科學。 17,1266-1272。 Melis,MR,Succu,S.,Mascia,MS,Argiolas,A.,2004a。 大麻的CB1受體在雄性大鼠的室旁核中的拮抗作用誘導陰莖勃起。 神經科學。 快報。 359,17-20。 Melis,MR,Succu,S.,Mascia,MS,Cortis,L.,Argiolas,A.,2004b。 在性活動期間,雄性大鼠的室旁核中的細胞外興奮性氨基酸增加:NMDA受體在勃起功能中的主要作用。 歐元。 J. 神經科學。 19,2569-2575。 Melis,MR,Succu,S.,Mascia,MS,Argiolas,A.,2005。 PD-168,077是一種選擇性多巴胺D4受體激動劑,當注射到雄性大鼠的室旁核時誘導陰莖勃起。 神經科學。 快報。 379,59-62。 Melis,MR,Succu,S.,Mascia,MS,Sanna,F.,Melis,T.,Succu,S.,Castelli,MP,Argiolas,A.,2006a。 SR 141716A誘導的雄性大鼠陰莖勃起:腦室內谷氨酸和一氧化氮的參與。 神經藥理學50,219-228。 Melis,MR,Succu,S.,Sanna,F.,Mascia,MS,Melis,T.,Enguehard-Gueiffier,C.,Hubner,H.,Gmenier,P.,Gueiffier,A.,Argiolas,A., 2006b。 PIP3EA和PD168077是兩種選擇性多巴胺D4受體激動劑,可誘導雄性大鼠陰莖勃起:大腦中的部位和作用機制。 歐元。 J. 神經科學。 24,2021-2030。 Melis,MR,Melis,T.,Cocco,C.,Succu,S.,Sanna,F.,Pillolla,G.,Boi,A.,Ferri,GL,Argiolas,A.,2007。 注射到腹側被蓋區的催產素誘導陰莖勃起並增加伏核中的細胞外多巴胺 梅利斯,A。 Argiolas / Neuroscience and Biobehavioral評價35(2011)939-955 955和雄性大鼠下丘腦室旁核。 歐元。 J. 神經科學。 26,1026-1035。 Melis,MR,Sanna,F.,Succu,S.,Zarone,P.,Boi,A.,Argiolas,A.,2009a。 催產素在雄性大鼠性行為的預期和完成階段的作用。 在:Jastrow,H.,Feuerbach,D。 (編輯),催產素研究手冊:合成,儲存和釋放,行動和藥物形式。 Nova Publishers Inc,紐約,美國,pp。 109-125。 Melis,MR,Succu,S.,Sanna,F.,Boi,A.,Argiolas,A.,2009b。 注射到腹側下託或杏仁核的後內側皮質核中的催產素誘導陰莖勃起並增加雄性大鼠伏隔核中的細胞外多巴胺。 歐元。 J. 神經科學。 30,1349-1357。 Melis,MR,Succu,S.,Cocco,C.,Caboni,E.,Sanna,F.,Boi,A.,Ferri,GL,Argiolas,A.,2010。 當注射到腹側下托室時,催產素誘導陰莖勃起:一氧化氮和谷氨酸的作用。 神經藥理學58,1153-1160。 Moreland,RB,Nakane,M.,Donnelly-Roberts,DL,Miller,LN,Chang,R.,Uchic,ME,Terranova,MA,Gubbins,EJ,Helfrich,RJ,Namovic,MT,El-Kouhen,OF, Masters,JN,Brioni,JD,2004。 通過Galpha(qo2)與鈣通量偶聯的人多巴胺D(5)樣受體穩定細胞系的比較藥理學。 生物化學。 藥理學。 68,761-772。 Moos,F.,Freund-Mercier,MJ,Guerne,Y.,Guerne,JM,Stoeckel,ME,Richard,P.,1984。 在體外通過大細胞核釋放催產素和加壓素:催產素對其自身釋放的特定促進作用。 J. 內分泌學。 102,63-72。 Murphy,MR,Seckl,JR,Burton,S.,Checkley,SA,Lightman,SL,1987。 男性性活動期間催產素和血管加壓素分泌的變化。 J. 臨床。 內分泌學。 代謝。 65,738-741。 Nishimori,K.,Young,LJ,Guo,Q.,Wang,Z.,Insel,TR,Matzuk,MM,1996。 哺乳需要催產素,但對於分娩或生殖行為不是必需的。 PROC。 國家科。 科學院。 科學。 美國 93,11699-11704。 Patel,S.,Freedman,S.,Chapman,KL,Emms,F.,Fletcher,AE,Knowles,M.,Marwood,R.,Mccallister,G.,Myers,J.,Curtis,J.,Kulagowski, JJ,Leeson,PD,Ridgill,M.,Graham,M.,Matheson,S.,Rathbone,D.,Watt,AP,Bristow,LJ,Rupniak,NM,Baskin,E.,Lynch,JJ,Ragan,CI ,1997。 L 745,870的生物學特徵,一種對多巴胺D4受體具有高親和力的選擇性拮抗劑。 J. 藥理學。 進出口。 療法。 283,636-647。 Pedersen,CA,Caldwell,JD,Jirikowski,GF,Insel,TR,1992。 產婦,性和社會行為中的催產素,紐約科學院年刊,第一卷。 652 紐約科學院,紐約。 Petrovic,P.,Kalisch,R.,Singer,T.,Dolan,RJ,2008。 催產素減弱了條件面和杏仁核活性的情感評估。 J. 神經科學。 28,6607-6615。 Pfaus,JG,Everitt,BJ,1995。 性行為的精神藥理學。 在:Knobil,FE,Kupfer,DJ (編輯),精神藥理學:第四代進步。 Raven Press,紐約,pp。 742-758。 Rajfer,J.,Aronson,WJ,Bush,PA,Dorey,FJ,Ignarro,LJ,1992。 一氧化氮作為對非腎上腺素能,非膽鹼能神經傳遞的反應的海綿體鬆弛的介質。 N. 英格蘭。 J. 醫學。 326,90-94。 Roeling,TAP,Van Erp,AMM,Meelis,W.,Kruk,MR,Veening,JG,1991。 NMDA注射到大鼠下丘腦室旁核的行為影響。 Brain Res。 550,220-224。 薩克斯,BD,1997。 通過發情雌性的空氣氣味誘發雄性大鼠的勃起。 生理學。 Behav。 62,921-924。 薩克斯,BD,2000。 勃起功能,勃起功能障礙和性喚起的生理學和分類的背景方法。 神經科學。 Biobehav。 牧師 24,541-560。 薩克斯,BD,2007。 男性性喚起的語境定義。 HORM。 Behav。 51,569-578。 Sanchez,F.,Alonso,JR,Arevalo,R.,Blanco,E.,Aijon,J.,Vazquez,R.,1994。 NADPH-心肌黃酶與血管加壓素和催產素共存在大鼠下丘腦大細胞神經分泌核中。 細胞組織研究 276,31-34。 Sanna,F.,Succu,S.,Boi,A.,Melis,MR,Argiolas,A.,2009。 磷酸二酯酶型5抑製劑促進雄性大鼠的非接觸性勃起:大腦中的作用部位和作用機制。 J. 性別。 醫學。 6,2680-2689。 Saphier,D.,Feldman,S.,1987。 室間隔和海馬刺激對室旁核神經元的影響。 神經科學20,749-755。 Sato-Suzuki,I.,Kita,I.,Oguri,M.,Arita,H.,1998。 通過電和化學刺激大鼠室旁核誘導的刻板印象的打哈欠反應。 J. 神經生理學。 80,2765-2775。 Schuman,EM,Madison,DV,1994。 一氧化氮和突觸功能。 安。 牧師 神經科學。 17,153-183。 Snyder,SH,1992。 一氧化氮:首先是一類新的神經遞質? 科學254,494-496。 Sofroniew,MV,1983。 血管加壓素和催產素在哺乳動物的大腦和脊髓中。 趨勢神經科學。 6,467-472。 Sokoloff,P.,Schwartz,JC,1995。 半年後新型多巴胺受體。 趨勢Pharmacol。 科學。 16,270-275。 Southam,E.,Garthwaite,J.,1993。 大鼠腦內一氧化氮 - 環GMP信號通路。 神經藥理學32,1267-1277。 Stancampiano,R.,Melis,MR,Argiolas,A.,1994。 5-HT1c激動劑在雄性大鼠中誘導的陰莖勃起和打哈欠:與多巴胺能和催產素傳遞的關係。 歐元。 J. 藥理學。 261,149-155。 Succu,S.,Mascia,MS,Sanna,F.,Melis,T.,Argiolas,A.,Melis,MR,2006。 大麻素CB1受體拮抗劑SR 141716A通過增加雄性大鼠的室旁核中的細胞外谷氨酸誘導陰莖勃起。 Behav。 Brain Res。 169,274-281。 Succu,S.,Sanna,F.,Melis,T.,Boi,A.,Argiolas,A.,Melis,MR,2007。 雄性大鼠下丘腦室旁核中的多巴胺受體的刺激誘導陰莖勃起並增加伏隔核中的細胞外多巴胺:中樞催產素的參與。 神經藥理學52,1034-1043。 Succu,S.,Sanna,F.,Cocco,C.,Melis,T.,Boi,A.,Ferri,GL,Argiolas,A.,Melis,MR,2008。 當注射到雄性大鼠的腹側被蓋區時,催產素誘導陰莖勃起:一氧化氮和環狀GMP的作用。 歐元。 J. 神經科學。 28,813-821。 Tanda,G.,Pontieri,FE,Di Chiara,G.,1997。 大麻素和海洛因通過常見的mu1阿片受體機制激活中腦邊緣多巴胺。 科學276,2048-2050。 Tang,Y.,Rampin,O.,Calas,A.,Facchinetti,P.,Giuliano,F.,1998。 確定的腰骶核的抗痛性和5-羥色胺能神經支配控制雄性大鼠的陰莖勃起。 神經科學82,241-254。 Theodosis,DT,1985。 在視上核中的催產素神經元上的催產素 - 免疫反應性末端突觸。 自然(倫敦)313,682-684。 Tindall,JS,1974。 導致催產素釋放的刺激物。 在:Geiger,SR,Knobil,E.,Sawyer,WH,Greef,R.,Astwood,EB (編輯),生理學手冊。 教派。 7,Endocrinology,vol。 四。 美國生理學會,華盛頓特區,pp。 257-267。 Torres,G.,Lee,S.,Rivier,C.,1993。 大鼠下丘腦一氧化氮合酶的發生和與神經肽的共定位。 摩爾。 細胞。 神經科學。 4,155-163。 Uhl-Bronner,S.,Waltisperger,E.,Martinez-Lorenzana,G.,Condes,LM,Freund-Mercier,MJ,2005。 大鼠前腦和脊髓中催產素結合位點的性二態表達。 神經科學135,147-154。 Vaccari,C.,Lolait,SJ,Ostrowski,NL,1998。 血管加壓素V1b和催產素受體信使核糖核酸在腦內的比較分佈。 內分泌學139,5015-5033。 Van Den Pol,A.,1991。 下丘腦突觸前軸突中的谷氨酸和天冬氨酸免疫反應性。 J. 神經科學。 11,2087-2101。 Veronneau-Longueville,F.,Rampin,O.,Freund-Mercier,MJ,Tang,Y.,Calas,A.,Marson,L.,McKenna,KE,Stoeckel,ME,Benoit,G.,Giuliano,F。 ,1999。 控制陰莖勃起的自主神經核的催產素神經支配。 神經科學93,1437-1447。 Vincent,SR,Kimura,H.,1992。 一氧化氮合酶在大鼠腦內的組織化學定位。 神經科學46,755-784。 Wagner,CK,Clemens,LG,1993。 含有神經生理素的途徑,從下丘腦的室旁核到腰椎脊髓中的性二態運動核。 J. 比較。 神經病學。 336,106-116。 Winslow,JT,Insel,TR,1991。 成對雄性松鼠猴的社會地位決定了對中樞催產素給藥的行為反應。 J. 神經科學。 11,2032-2038。 Wise,RA,Rompre,P.-P.,1989。 腦多巴胺和獎勵。 安。 牧師 心理學。 40,191-225。 Witt,DM,Insel,TR,1994。 男性性行為激活下丘腦室旁核中催產素神經元中的c-fos樣蛋白。 J. Neuroendocrinol。 6,13-18。 Witter,MP,2006。 大鼠下頜骨的連接:與柱狀和層狀組織有關的地形。 Behav Brain Res。 174,251-264。 Woodruff,GN,Foster,AC,Gill,R.,Kemp,JA,Wong,EH,Iversen,LL,1987。 MK-801與N-甲基-d-天冬氨酸受體之間的相互作用:功能性後果。 神經藥理學26,903-909。 Yamashita,H.,Shigeru,O.,Inenaga,K.,Kasai,M.,Uesugi,S.,Kannan,H.,Kaneko,T.,1987。 催產素在體外主要激發大鼠視上核中推定的催產素神經元。 Brain Res。 416,364-368。 Yells,DP,Hendricks,SE,Prendergast,MA,1992。 原發性細胞核的病變:對雄性大鼠交配行為的影響。 Brain Res。 596,73-79。 Young,WS,Shepard,E.,Amico,J.,Hennighausen,L.,LaMarca,ME,McKinney,C.,Ginns,EI,1996。 小鼠催產素的缺乏可防止乳汁排出,但不會導致生育或分娩。 J. Neuroendocrinol。 8,847-854。 Zahran,AR,Vachon,P.,Courtois,F.,Carrier,S.,2000。 在麻醉大鼠的下丘腦室旁核中註射興奮性氨基酸受體激動劑後,海綿體內陰莖壓力增加。 J. Urol。 164,1793-1797。