開発改訂版2008; 28 (1) : 62–77。土井: 10.1016/j.dr.2007.08.003
抽象
思春期は、意図しない怪我や暴力、アルコールや薬物の乱用、意図しない妊娠、性感染症の発生率の上昇をもたらす最適以下の決定や行動を特徴とする発達期です。 青年期の行動に関する伝統的な神経生物学的および認知的説明は、小児期および成人期と比較して、青年期に観察される行動の非線形の変化を説明することができていない。 このレビューはインパルス制御がこの期間中に比較的未熟である間の刺激への高められた応答として、行動におけるこれらの非線形変化の根底にある神経機構の生物学的にもっともらしい概念化を提供します。 最近のヒトの画像化および動物実験はこの見解の生物学的基礎を提供し、小児期および成人期に対する思春期の間のトップダウン制御システムに対する辺縁系報酬システムの異なる発達を示唆している。 この発達パターンは、リスクを冒す素因を持つ青年期に悪化し、転帰不良のリスクを高める可能性があります。
米国国立健康統計センターによると、米国では毎年13,000人以上の青少年が死亡している。これらの死亡の約70%は、自動車事故、不慮の事故、殺人、自殺によるものである(Eaton et al., 2006)。2005年の全米青少年危険行動調査(YRBS)の結果によると、青少年は飲酒運転やシートベルト非着用、武器の携帯、違法薬物の使用、意図しない妊娠やHIV感染を含む性感染症につながる無防備な性行為など、死亡や病気のリスクを高める行動をとっている(Eaton et al., 2006)。これらの統計は、青少年の危険な選択や行動を理解することの重要性を強調している。
青年が最適とは言えない選択行動をとる理由については、認知的および神経生物学的な仮説が数多く提唱されてきた。青年期の脳の発達に関する最近の文献レビューにおいて、Yurgelun-Todd (2007)は、青年期の認知発達は、認知制御能力の効率が徐々に高まることと関連していると示唆している。この効率は、前頭前野の成熟に依存していると説明されており、これは前頭前野の特定の領域における活動の増加 ( Rubia et al., 2000 ; Tamm, Menon, & Reiss, 2002 ) および無関係な脳領域の活動の低下 ( Brown et al., 2005 ; Durston et al., 2006 ) によって証明されている。
前頭前野の成熟による認知制御の改善のこの一般的なパターンは、小児期から成人期への発達の直線的増加を示唆している。 しかし、思春期の間に観察される最適以下の選択および行動は、思春期の行動および死亡率に関する国立健康統計センターによって証明されるように、小児期および成人期と区別することができる行動の非線形の変化を表す。 認知制御および未熟な前頭前野が最適以下の選択行動の基礎である場合、発達していない前頭前野および認知能力を考えると、子供たちは思春期の子供たちと著しく類似しているか、あるいはさらに悪い状態に見えるはずです。 したがって、未熟な前頭前野機能だけでは、思春期の行動を説明することはできません。
思春期における認知および神経生物学的変化を正確に概念化するには、思春期を単一の時点のスナップショット(Casey, Tottenham, Liston, & Durston, 2005 )としてではなく、過渡的な発達段階( Spear, 2000)として捉える必要がある。言い換えれば、この発達段階を理解するには、思春期への移行と思春期からの移行が、この発達段階の明確な特徴を区別するために不可欠である。認知および神経プロセスの発達軌跡を確立することは、これらの移行を特徴づけ、この時期の行動の変化に関する解釈を制約する上で不可欠である。認知レベルまたは行動レベルでは、思春期の若者は衝動的(すなわち、認知制御が欠如している)でリスクを冒すと特徴づけられるが、これらの概念は同義語として用いられ、それぞれの明確な発達軌跡が考慮されていない。神経生物学的レベルでは、ヒトの画像研究および動物実験は、衝動制御とリスクを伴う意思決定というこれらの別々の概念の根底にある神経系に、明確な神経生物学的基盤と発達軌跡が存在することを示唆している。
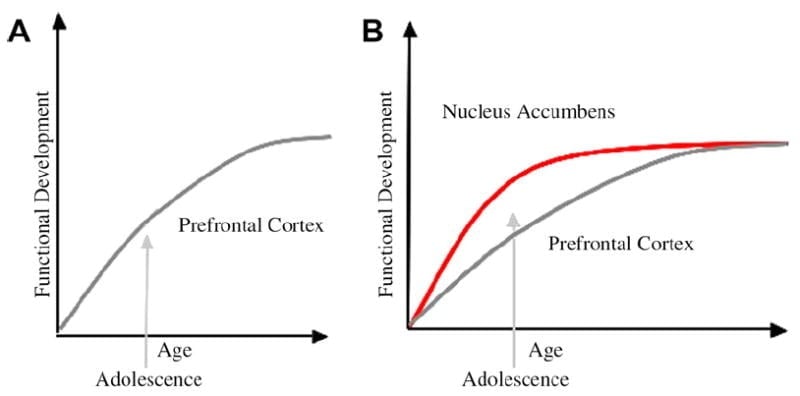
この枠組みの中で、げっ歯類モデル(Laviola、Adriani、Terranova、& Gerra、1999 ; Spear、2000)と最近の思春期の画像研究(Ernst et al.、2005 ; Galvan、Hare、Voss、Glover、& Casey、2007 ; Galvan et al.、2006)に基づいて、思春期の発達に関する神経生物学的モデルを開発しました。下の図 1にこのモデルを示します。左側は、前頭前野の未熟さにほぼ限定される思春期の従来の特徴付けです。右側は、辺縁系皮質下領域と前頭前野のトップダウン制御領域を一緒に考慮する必要があることを示す、我々が提案する神経生物学的モデルです。この図は、これらのシステムの異なる発達軌跡を示しており、辺縁系は前頭前野制御領域よりも早く発達します。このモデルによれば、思春期には、機能的に成熟した辺縁系領域の影響をより強く受ける(つまり、辺縁系と前頭前野の制御のバランスが崩れる)のに対し、子どもではこれらのシステム(辺縁系と前頭前野の両方)はどちらもまだ発達段階にあり、成人ではこれらのシステムが完全に成熟している。この視点は、発達に伴う行動の非線形的な変化の根拠となる。これは、辺縁系が成熟度が低い前頭前野の制御領域よりも早く成熟するためである。発達と経験に伴い、これらの領域間の機能的結合が、これらの領域のトップダウン制御のメカニズムを提供する(Hare、Voss、Glover、& Casey、2007a)。さらに、このモデルは、思春期の危険行動に関する健康統計と、思春期の若者は推論して、自分が従事する行動のリスクを理解できるというReynaとFarley(2006)の鋭い観察との矛盾を解消する。私たちのモデルによれば、感情的に重要な状況では、前頭前野の制御システムに比べて成熟度が高い辺縁系が制御システムよりも優位に立つと考えられます。このモデルを支持する行動研究やヒト画像研究の証拠は、報酬や感情的な状況における行動の文脈で示されています(Galvan et al., 2006 , 2007 ; Hare, Voss, Glover, & Casey, 2007b ; Hare et al., 2007a)。さらに、脳がこのように発達する理由、そして一部の10代の若者が最適とは言えない意思決定をして長期的な結果が悪化するリスクが高い理由についても考察しています(Galvan et al., 2007 ; Hare et al., 2007b)。
青年期の行動に関する伝統的な説明は、前頭前野の長期にわたる発達によるものであると示唆されています(A)。 我々のモデルは、危険な選択と行動に関係している皮質下側辺縁領域(例えば側坐核)と一緒に前頭前野の発達を考慮に入れている(B)。
目標指向行動の開発
認知発達の礎石は、特に説得力のあるインセンティブの存在下で、不適切な思考や行動を目標指向の行動に有利に抑制することである(ケーシー、ガルバン、ノウサギ、2005年; Caseyら、2000b; ケーシー、トーマス、デビッドソン、クンツ、フランツェン、2002a; ケーシー、トッテナム、フォッセラ、2002b) 多くの古典的な発達研究は、この能力が小児期および青年期を通して発達することを示しました(ケース、1972; Flavell、Feach、&Chinsky、1966; キーティング&ボビット、1978年; パスカルレオーネ、1970) いくつかの理論家は、認知発達は処理速度と効率の向上によるものであり、精神的能力の向上によるものではないと主張している(例えば、 ビョークランド、1985; ビョークランド、1987; ケース、1985) 他の理論家は、彼らの認知発達の説明に「抑制的」プロセスの構築を含めている。Harnishfeger&Bjorkland、1993年) この説明によると、未熟な認知は、抑制されなければならない競合源からの干渉に対する感受性によって特徴付けられる(例えば、 ブレーナード&レイナ、1993年; ケーシー、トーマス、デビッドソン、クンツ、フランツェン、2002a; デンプスター、1993; ダイヤモンド、1985; Munakata&Yerys、2001) したがって、目標指向の行動は、結果の最適化のための衝動の制御または満足の遅延を必要とし、この能力は小児期および青年期にわたって成熟するように思われる。
思春期の行動は、衝動的で危険であるとほぼ同義語として説明されてきましたが、これらの概念は異なる認知プロセスと神経プロセスに依存しており、異なる発達軌跡を持つ別個の概念を示唆しています。具体的には、文献レビューによると、衝動性は児童期から青年期にかけて年齢とともに減少し(Casey et al., 2002a ; Casey, Galvan et al., 2005 ; Galvan et al., 2007)、前頭前野の発達の長期化と関連していることが示唆されています(Casey, Galvan et al., 2005)。ただし、年齢に関係なく、個人が衝動的であるか否かの程度には違いがあります。
衝動制御や認知制御とは対照的に、リスクテイクは児童期や成人期に比べて青年期に増加する傾向があり、報酬の評価に関与することが知られている皮質下システムと関連している。本稿でレビューするヒトの画像研究では、リスクを伴う選択をする際に皮質下(例えば側坐核)の活性化が増加することが示唆されており(Kuhnen & Knutson, 2005 ; Matthews & et al., 2004 ; Montague & Berns, 2002)、これは児童期や成人期に比べて青年期に顕著である(Ernst et al., 2005 ; Galvan et al., 2006)。これらの知見は、報酬やインセンティブに基づく行動には異なる軌跡があることを示唆しており、不適切な選択や行動を抑制して目標指向的な行動を優先するという点で、長期的かつ直線的な発達過程を示す制御システムに比べて、これらのシステムの発達が早いことを示している。
ヒト脳発達の神経画像研究からの証拠
近年の青年期の脳発達に関する研究は、発達中のヒト集団に容易に適用できる神経画像法の進歩に基づいている。これらの方法は磁気共鳴画像法(MRI)に依存しており(図2参照)、構造MRI(構造の大きさや形状を測定するために使用)、機能MRI(脳活動のパターンを測定するために使用)、拡散テンソル画像法(DTI)(白質線維束の接続性を示すために使用)などが含まれる。皮質領域と皮質下領域間の競合に関する我々の発達モデルの証拠は、それぞれDTIとfMRIによって測定された未熟な構造的および機能的接続性によって裏付けられている。

人間の脳の発達に関するMRI研究
いくつかの研究では、構造MRIを使用して正常な脳発達の解剖学的過程をマッピングしています(Durston et al., 2001のレビューを参照)。脳全体のサイズは6歳までに成人サイズの約90%になりますが、脳の灰白質と白質のサブコンポーネントは思春期を通して動的な変化を受け続けます。最近の縦断的MRI研究のデータによると、灰白質の体積は逆U字型のパターンを示し、白質よりも領域ごとの変動が大きいことが示されています(Giedd, 2004 ; Gogtay et al. , 2004 ; Sowell et al, 2003 ; Sowell, Thompson, & Toga, 2004)。一般的に、運動系や感覚系などの一次機能を担う領域が最も早く成熟し、これらの一次機能を統合する高次連合野は後に成熟します(Gogtay et al., 2004 ; Sowell, Thompson, & Toga, 2004)。例えば、MRIを用いた測定による研究では、皮質灰白質の減少は一次感覚運動野で最も早く起こり、背外側前頭前野と側頭葉皮質では最も遅く起こることが示されている(Gogtay et al., 2004)。このパターンは、前頭前野が脳の成熟が最も遅い領域の一つであることを示す非ヒト霊長類およびヒトの死後研究と一致している(Bourgeois, Goldman-Rakic, & Rakic, 1994 ; Huttenlocher, 1979)。灰白質とは対照的に、白質の体積はほぼ直線的に増加し、発達期から成人期まで増加し続ける(Gogtay et al., 2004)。これらの変化は、おそらくオリゴデンドロサイトによる軸索の継続的なミエリン化を反映しており、神経伝導とコミュニケーションを強化していると考えられる。
構造変化を調べる際に皮質下領域にはあまり注意が払われてこなかったが、発達中の脳の最大の変化のいくつかはこれらの領域、特に基底核(Sowell et al., 1999、図3参照)で見られ、特に男性で顕著である(Giedd et al., 1996)。基底核と前頭前野領域内の構造的体積の発達的変化は、小児期と青年期に起こる既知の発達プロセス(樹状突起の分岐、細胞死、シナプス刈り込み、ミエリン化など)に照らして興味深い。これらのプロセスにより、発達と学習に伴う前頭前野と皮質下領域間の接続の微調整と強化が可能になり、認知制御の向上と一致する可能性がある。これらの構造的変化は認知の変化とどのように関連しているのだろうか?多くの研究が、神経心理学的および認知的測定を使用して前頭葉の構造的成熟と認知機能との関連を示している(例:Sowell et al., 2003)。具体的には、MRIに基づく前頭前皮質および基底核の領域体積と認知制御の指標(すなわち、不適切な反応を別の反応に置き換える能力、または無関係な刺激属性への注意を抑制して関連する刺激属性に向ける能力)との関連性が報告されている(Casey、Trainorら、1997)。これらの知見は、認知の変化が脳の構造的変化に反映されることを示唆しており、皮質(例えば、前頭前皮質)だけでなく皮質下(基底核)の発達の重要性を強調している。

ヒト脳発達のDTI研究
レビューされたMRIベースの形態計測研究は、皮質接続が発達と経験に伴ってシナプスの過剰が排除され、関連する接続が強化されることで微調整されていることを示唆している。DTIなどのMRI技術の最近の進歩は、脳と行動の発達における特定の白質路の役割をより詳細に調べるための潜在的なツールを提供する。本稿に関連するのは、線維路の発達と認知能力の向上を関連付けた神経画像研究である。具体的には、DTIベースの前頭前野白質発達の測定値と子供の認知制御との関連性が示されている。ある研究では、この能力の発達は前頭前野-頭頂葉線維路と正の相関関係にあることが示され(Nagy、Westerberg、& Klingberg、2004)、これは機能的神経画像研究で、これらの領域が大人と比較して子供で異なる動員を示すことと一致している。
同様のアプローチを用いて、Liston ら (2005)は、前頭前野と基底核の間および後部線維路の間の白質線維路は、小児期から成人期にかけて発達し続けるが、ゴー/ノーゴー課題の成績で測定される衝動制御と相関するのは前頭前野と基底核の間の線維路のみであることを示した。前頭前野線維路は、同じ課題を用いた fMRI 研究で特定された関心領域によって定義された。発達 DTI 研究の両方において、線維路の測定値は発達と相関していたが、特定の線維路と認知機能の特異性は、特定の線維路 ( Liston ら、2005 ) または認知能力 ( Nagy ら、2004 ) を分離することによって示された。これらの知見は、認知発達の神経基盤における年齢依存的な変化について主張する際には、領域的な変化だけでなく、回路に関連する変化も検討することの重要性を強調している。
行動および脳発達の機能的MRI研究
MRIとDTIによって測定された構造変化は発達中の行動変化と関連していますが、構造と機能の関連を調べるためのより直接的なアプローチは、fMRIと同様に脳と行動の変化を同時に測定することです。 MRIを用いて発達中の脳の機能的変化を測定する能力は、発生科学の分野に大きな可能性を秘めています。 本稿の文脈では、fMRIは思春期の行動の解釈を制限するための手段を提供します。 前に述べたように、前頭前野の発達は意思決定や認知制御などの高次認知能力の成熟に重要な役割を果たすと考えられています(ケーシー、トッテナム、フォッセラ2002b; Casey、Trainor他、1997) fMRIとともに、フランカー、ストループ、ゴー/ゴーゴータスクを含むこれらの能力の神経生物学的根拠を評価するために、多くのパラダイムが使用されています(Casey、Castellanos他、1997; ケーシー、ギッド、トーマス、2000a; Durstonら、2003) まとめると、これらの研究は、子供がこれらの課題を遂行するときに、大人よりも異なるが多くの場合より大きくより拡散した前頭前野を募集することを示している。 課題遂行に中心的な(すなわち、認知能力と相関する)脳領域内の活動パターンは、年齢とともにより焦点が絞られるかまたは微調整されるが、課題遂行と相関しない領域は、年齢とともに活動が減少する。 このパターンは両方の断面で観察されています(Brownら、2005)および縦断的研究(Durstonら、2006)そしてさまざまなパラダイムにまたがる。 神経画像研究はそのような発達的変化のメカニズム(例えば樹状分枝化、シナプス剪定)を明確に特徴付けることはできないが、この知見は成熟した活性化脳領域内の発達、およびそこからの投影の精密化を反映している。期間 (Brownら、2005; Bunge、Dudukovic、Thomason、Vaidya、およびGabrieli、2002年; Casey、Trainor他、1997; Caseyら、2002a; Crone、Donohue、Honomichl、Wendelken、およびBunge、2006年; ルナら、2001; Mosesら、2002; Schlaggarら、2002; Tammら、2002; Thomasら、2004; Turkeltaub、Gareau、Flowers、Zeffiro、およびEden、2003年).
この方法論は、青年が実際に十分な認知制御を欠いている(衝動的である)のか、それとも選択や行動においてリスクを冒しているのかについて、どのように情報を提供してくれるのでしょうか。ゴー/ノーゴー課題などの認知制御課題によって測定される衝動制御は、上記のように、幼少期から青年期にかけて直線的な発達パターンを示します。しかし、最近の神経画像研究では、青年期のリスクテイクに特有の報酬関連処理の調査が始まっています(Bjork et al., 2004 ; Ernst et al., 2005 ; May et al., 2004)。これらの研究は、主に報酬の予測に関与する基底核の一部である側坐核の領域に焦点を当てており、この領域の発達をトップダウン制御領域(前頭前皮質)と関連付けて特徴づけることには焦点を当てていません。最近の報告では、リスクを取る行動に関する金銭的意思決定課題において、青年期の腹側前頭前野の活動が成人よりも低いことが示されている(Eshel、Nelson、Blair、Pine、& Ernst、2007)。
全体として、皮質下領域(例えば側坐骨)における報酬回路の発達が皮質前頭前野の発達とどのように変化するかを調べた研究はほとんどない。 さらに、これらの神経の変化が、報酬獲得、衝動性、および危険を冒す行動とどのように一致するかは、比較的未知のままです。 私たちの神経生物学的モデルは、恐怖に対する意思決定や衝動的行動の増加を説明しながら、報酬に対する反応性の高まりと行動制御領域の未熟さの組み合わせが、青少年を長期的な利益よりも早急に追い求める可能性を示唆している。 成人期を通じて小児期にわたる意思決定の皮質下(例:側坐)および皮質(例:前頭前野)の発達を追跡することは、青年期に報告された変化がこの発達期に特有のものか幼年期から成人期にかけてやや直線的なパターン。
最近のfMRI研究から得られた実証的証拠は、我々の神経生物学的モデルを裏付けるものであり、思春期前後の変化を検証することで、思春期を理解するための過渡的なアプローチを示している。この研究(Galvan et al., 2006)では、発達段階全体にわたる報酬操作に対する行動的および神経的反応を調べ、動物(Hikosaka & Watanabe, 2000 ; Pecina, Cagniard, Berridge, Aldridge, & Zhuang, 2003 ; Schultz, 2006)および成人の画像研究(例:Knutson, Adams, Fong, & Hommer, 2001 ; O,Doherty, Kringelbach, Rolls, Hornak, Andrews, 2001 ; Zald et al., 2004 )および依存症の研究( Hyman & Malenka, 2001 ; Volkow & Li, 2004 )における報酬関連の学習および行動に関与する脳領域に焦点を当てました。げっ歯類モデル(Laviola et al., 1999 ; Spear, 2000)および以前の画像研究(Ernst et al., 2005)に基づき、我々は、小児および成人と比較して、青年期では側坐核の活性化が過剰であり、同時に前頭前野のトップダウン制御領域の動員が未熟であると仮説を立てた。青年期では成人と比較してこれらの前頭前野と辺縁系皮質下領域間の機能的結合が遅れていることを示す最近の研究は、これらの領域のトップダウン制御の欠如のメカニズムを提供している(Hare et al., 2007a)。
我々の研究結果は、げっ歯類モデル(Laviola、Macri、Morley-Fletcher、& Adriani、2003)および以前の画像研究(Ernst et al.、2005)と一致しており、思春期には報酬に対する側坐核の活動が亢進することを示唆している。実際、子供や大人と比較して、思春期の若者は報酬を期待して側坐核の反応が過剰であった。しかし、子供と思春期の若者はどちらも、前頭前野の制御領域において大人よりも未熟な反応を示した。これらの研究結果は、これらの領域の発達の軌跡が、子供や大人と比較して側坐核の活動亢進の根底にある可能性があり、それがこの発達期に観察される衝動的で危険な行動の増加と関連している可能性があることを示唆している(図4参照)。

前頭前野と皮質下領域の活動の差異は、多くの発達期のfMRI研究で報告されている(Casey et al., 2002b ; Monk et al., 2003 ; Thomas et al., 2004)。通常、これらの知見は、前頭前野と皮質下領域の発達の不均衡ではなく、前頭前野の未熟さという観点から解釈されてきた。前頭前野がさまざまな状況で適切な行動を導くという証拠があることを考えると(Miller & Cohen, 2001)、前頭前野の活動が未熟だと、将来の結果の適切な推定やリスクのある選択の評価が妨げられ、報酬の評価において側坐核よりも影響力が小さくなる可能性がある。このパターンは、意思決定が長期的な利益よりも短期的な利益によって偏っている場合に、皮質活動に比べて皮質下活動が上昇することを示す以前の研究と一致している(McClure, Laibson, Loewenstein, & Cohen, 2004)。さらに、fMRIを用いた研究では、側坐核の活動がその後のリスクテイク行動と正の相関関係にあることが示されている(Kuhnen & Knutson, 2005)。思春期には、幼少期や成人期に比べて、未熟な腹側前頭前野が、強く活性化された報酬処理領域(側坐核など)に対する十分なトップダウン制御を提供できないため、報酬評価において、側坐核に比べて前頭前野系(眼窩前頭皮質)の影響が小さくなる可能性がある。
なぜ脳はこのように発達するようにプログラムされているのでしょうか?
思春期は、児童期と成人期の間の移行期であり、多くの場合、性成熟期と同時期に起こります。性成熟期は性成熟の始まりを示し(Graber & Brooks-Gunn, 1998)、生物学的マーカーによって定義できます。思春期は、曖昧な発生学的時間経過を伴う成人期への漸進的な移行として説明できます(Spear, 2000)。進化論的に言えば、青年期は、家族の保護から離れて成功するために自立スキルを獲得する時期ですが、同時に有害な状況(例:怪我、うつ病、不安、薬物使用および中毒)に陥る可能性も高まります(Kelley、Schochet、& Landry、2004)。自立を求める行動は、仲間との社会的交流の増加や、目新しさを求める行動やリスクを取る行動の強化など、種を超えて広く見られます。心理社会的要因は、青年期の危険行動傾向に影響を与えます。しかし、危険行動は、未熟な「自己制御能力」と結びついた目新しさや感覚を求める行動の増加との間の生物学的に駆動される不均衡の産物です(Steinberg、2004)。私たちの神経生物学的データは、これがこれら2つのシステム(辺縁系と制御系)の異なる発達によって起こることを示唆しています。
推測は、この発達パターンが進化的特徴であることを示唆するでしょう。 ホルモンが思春期の若者に性的パートナーを探すように駆り立てるのと同時に、あなたの家族や村を離れて仲間やリスクテイクを見つけるためにハイリスク行動に取り組む必要があります。 思春期が無期限に広がる今日の社会では、両親と同居し、経済的に依存し、人生の後半で仲間を選ぶ子供たちと共に、この進化は不適切と見なされるかもしれません。
種を超えて、思春期に目新しさを求める行動やリスクを取る行動が増加するという証拠がある。同年代の仲間を探したり、親と喧嘩したりすることは、思春期の個体が繁殖のために縄張りから離れるのに役立つが、これはげっ歯類、非ヒト霊長類、一部の鳥類を含む他の種でも見られる(Spear、2000)。成体と比較して、思春期前後のラットは、自由選択の目新しさパラダイムにおいて目新しさを求める行動が増加する(Laviola et al.、1999)。神経化学的証拠は、思春期の脳における皮質および皮質下ドーパミン系のバランスが、思春期中に皮質ドーパミンレベルが高くなる方向にシフトし始めることを示している(Spear、2000)。同様に、思春期から成人期にかけてドーパミン作動性神経支配が長期化することは、非ヒト霊長類の前頭前皮質でも示されている(Rosenberg & Lewis、1995)。このように、見かけ上のリスクを冒す傾向が高まっているように見えることは、種を超えて見られ、重要な適応上の目的を持っていると考えられる。
生物学的素因、発生、およびリスク
衝動制御とリスクを取ることにおける個人差は、心理学において以前から認識されてきた(Benthin、Slovic、& Severson、1993)。社会心理学、認知心理学、発達心理学の文献で報告されているこれらの能力における個人差の典型的な例の1つは、満足の遅延である(Mischel、Shoda、& Rodriguez、1989)。満足の遅延は、通常3~4歳の幼児で評価される。幼児は、小さな報酬(クッキー1枚)と大きな報酬(クッキー2枚)のどちらを好むか尋ねられる。次に、実験者は今後の活動の準備のために部屋を出ると子供に伝え、子供が席にとどまりクッキーを食べなければ大きな報酬がもらえることを説明する。子供が待てない場合、または待てない場合は、ベルを鳴らして実験者を呼び、小さな報酬を受け取るように指示する。子供が課題を理解したことが明らかになったら、2つの報酬とベルが置かれたテーブルに座らせる。部屋の気を散らすものは最小限に抑えられ、おもちゃ、本、絵などは一切置かれない。実験者は15分後、または子供がベルを鳴らしたり、報酬を食べたり、苦痛の兆候を示したりした後に戻る。ミシェルは、子供たちが通常2つの行動をとることを示した。(1) クッキーをもらうためにほぼすぐにベルを鳴らすが、これは1つしかもらえないことを意味する。(2) 待って利益を最大化し、両方のクッキーを受け取る。この観察は、非常に目立つインセンティブに直面した際の衝動を制御する能力において、一部の個人は他の人よりも優れており、この偏りは幼児期に検出され( Mischel et al., 1989 )、青年期および若年成人期を通じて持続するようであることを示唆している( Eigsti et al., 2006 )。
最適な意思決定と行動における個人差を説明できるものは何でしょうか?一部の理論家は、報酬処理に関与するドーパミン作動性中脳辺縁系回路が危険行動の根底にあると提唱しています。ドーパミン関連遺伝子の対立遺伝子変異など、この回路の個人差は、皮質下領域におけるドーパミンの量が少なすぎたり多すぎたりすることで、危険行動に関与する傾向と関連している可能性があります(O'Doherty、2004)。側坐核は、金銭的リスクパラダイムにおいて危険な選択をする直前に活動が増加することが示されており(Kuhnen & Knutson, 2005 ; Matthews et al., 2004 ; Montague & Berns, 2002)、前述のように、青年は子供や大人に比べて報酬結果に対する側坐核の活動が過剰に高まることが示されています(Ernst et al., 2005 ; Galvan et al., 2006)。これらのデータは総合的に、青年は集団として危険な選択をしやすい傾向があることを示唆していますが(Gardener & Steinberg, 2005)、一部の青年は他の青年よりも危険な行動に走りやすく、結果として負の結果に陥るリスクが大きくなる可能性があります。したがって、発達段階にある集団におけるリスクテイクと報酬処理に関連する複雑な脳と行動の関係を検討する際には、個々のばらつきを考慮することが重要です。
リスクテイク行動における個人差を探るため、Galvan ら (2007) は最近、多額の金銭的報酬を期待する際の報酬関連神経回路の活動と、青年期のリスクテイクおよび衝動性の性格特性尺度との関連性を調べた。7 歳から 29 歳までの被験者から、機能的磁気共鳴画像法と、リスク行動、リスク認識、および衝動性に関する匿名自己報告評価尺度を取得した。発達を通じて、側坐核の活動とリスク行動を行う可能性との間に正の相関関係が見られた。この活動は、そのような行動の予想される肯定的または否定的結果に対する個人の評価に応じて変化した。リスク行動が深刻な結果につながると認識した被験者は、報酬に対する側坐核の活性化が少なかった。この関連性は主に子供によってもたらされ、大人はそのような行動の結果を起こりうると評価していた。衝動性の評価は側坐核の活動とは関連がなく、むしろ年齢と関連していた。これらの研究結果は、思春期には、衝動性の単純な変化ではなく、発達上の変化と、危険行動に関与する個人の素質のばらつきが相まって、一部の個人が危険行動に関与しやすくなる可能性があることを示唆している(図5参照)。

思春期の行動は、衝動的で危険であると繰り返し特徴づけられてきたが(Steinberg、2004、2007)、画像研究文献のこのレビューは、これらの行動には異なる神経生物学的基盤と異なる発達軌跡があることを示唆している。具体的には、衝動性は腹側前頭前野の未熟な発達と関連しており、幼少期から成人期にかけて徐々に減少する(Casey、Galvanら、2005 )。Galvanら(2007)の研究における衝動性評価と年齢の負の相関は、この考えをさらに裏付けている。対照的に、リスクを取る行動は側坐核の活動増加と関連しており(Kuhnen & Knutson, 2005 ; Matthews et al., 2004 ; Montague & Berns, 2002)、これは子供や大人に比べて青年期に顕著である(Ernst et al., 2005 ; Galvan et al., 2006)。したがって、青年期の選択や行動は、衝動性や前頭前野の発達の遅れだけでは説明できない。なぜなら、そうであれば子供の方がより大きなリスクを取ると予測されるからである。これらの知見は、なぜ一部の青年が他の青年よりも大きなリスクにさらされるのかという神経学的根拠を提供するだけでなく、青年期の行動がリスクを取る点で子供や大人とどのように異なるのかという根拠も提供する。
これらのデータは総合的に見て、青年期は集団としてリスクを冒す傾向があるものの(Gardener & Steinberg, 2005)、一部の青年は他の青年よりも危険な行動に走りやすく、結果として負の結末を迎えるリスクが大きくなることを示唆している。これらの知見は、発達段階にある集団におけるリスクテイクと報酬処理に関連する複雑な脳と行動の関係を考察する際に、個々のばらつきを考慮することの重要性を強調している。さらに、こうした個人差や発達段階の違いは、薬物使用、ひいては依存症に関連するリスクテイクに対する一部の個人の脆弱性を説明するのに役立つ可能性がある。
結論
ヒトのイメージング研究は前線条体領域の構造的および機能的変化を示している(Gieddら、1996, 1999; Jerniganら、1991; Sowellら、1999; レビュー用 Casey、Galvanら、2005それは認知制御と自己調節の平行した増加と思われる(Casey、Trainor他、1997; Luna&Sweeney、2004年; ルナら、2001; Rubiaら、2000; スタインバーグ、2004も参照してください スタインバーグ、2008、 この問題)。 これらの変化は、前頭前野の活性化が時間の経過とともにびまん性からより局所的な動員へとシフトすることを示しているようです(Brownら、2005; Bungeら、2002; Casey、Trainor他、1997; Durstonら、2006; Mosesら、2002)および青年期における皮質下領域の増加した動員(Caseyら、2002a; Durstonら、2006; ルナら、2001) 神経画像研究はそのような発達の変化のメカニズムを決定的に特徴付けることはできないが、これらの体積および構造の変化は、発達中の系の微調整を示唆する成熟の間のこれらの脳領域内の発達および投影からの予測を反映し得る。
総合すると、ここでまとめられた知見は、青年期におけるリスク行動の増加が、皮質下快楽領域と皮質制御領域の異なる発達軌跡と関連していることを示唆している。これらの発達的変化は、報酬系の活動における個人差によって悪化する可能性がある。青年期は報酬追求とリスク行動を特徴とする時期として区別されてきたが(Gardener & Steinberg, 2005 ; Spear, 2000)、報酬に対する神経反応の個人差は、一部の青年を他の青年よりも多くのリスクを取らせ、負の結果のリスクを高める。これらの知見は、青年期のリスク行動に関連するさまざまな知見を統合し、負の行動に関与する傾向の個人差と発達マーカーを理解する上で重要な基礎を提供する。
参考情報
- ベンチンA、Slovic P、Severson H.思春期のリスク認識に関する心理測定的研究。 思春期のジャーナル。 1993。16:153-168。 [PubMedの]
- Bjork JM、Knutson B、Fong GW、Caggiano DM、Bennett SM、Hommer DW。 青年期におけるインセンティブ誘発脳活性化若年成人との類似点と相違点 神経科学ジャーナル。 2004。24:1793-1802。 [PubMedの]
- ビョークランドDF。 子供の記憶における組織の発達における概念的知識の役割 で:ブレーナードCJ、プレスリーM、編集者。 記憶発達における基本過程認知発達研究における進歩 ニューヨーク:Springer-Verlag。 1985 pp。103 – 142。
- ビョークランドDF。 知識ベースの年齢変化が子供の記憶の発達にどのように寄与するか:解説的レビュー 発達レビュー 1987。7:93-130。
- アカゲザルの前頭前野におけるBourgeois JP、Goldman-Rakic PS、Rakic P.シナプス形成。 大脳皮質。 1994。4:78-96。 [PubMedの]
- ブレーナードCJ、レイナVF。 認知発達における記憶独立性と記憶干渉 心理学的レビュー 1993。100:42-67。 [PubMedの]
- ブラウンTT、ルガーHM、コールソンRS、ミージンFM、ピーターセンSE、シュラガーBL。 単語生成のためのヒト脳機能組織の発達的変化 大脳皮質。 2005。15:275-290。 [PubMedの]
- Bunge SA、Dudukovic NM、Thomason ME、Vaidya CJ、Gabrieli JD。 小児の認知制御に対する未熟前頭葉の寄与:fMRIからの証拠 ニューロン。 2002。33:301-311。 [PubMedの]
- ケースR.ネオ・ピアジェの容量構成の検証 実験的児童心理学のジャーナル。 1972。14:287-302。
- ケースR. 知的発達:成人への誕生 ニューヨーク:アカデミックプレス。 1985
- ケーシーBJ、カステラノスFX、ギードJN、マーシュWL、ハンバーガーSD、シューベルトAB。 他。 反応抑制および注意欠陥/多動性障害における右前頭線条体回路の関与 アメリカ児童青年精神医学アカデミー。 1997。36:374-383。 [PubMedの]
- ケーシーBJ、ガルバンA、野ウサギTA。 認知発達中の脳機能組織の変化 神経生物学における最近の意見 2005。15:239-244。 [PubMedの]
- ケーシーBJ、ギードJN、トーマスKM。 構造的および機能的脳発達と認知発達との関係 生物心理学 2000a;54:241-257。 [PubMedの]
- ケーシーBJ、トーマスKM、デビッドソンMC、Kunz K、Franzen PL。 刺激 - 反応両立性課題による線条体および海馬機能の発達的解離 神経科学ジャーナル。 2002a;22:8647-8652。 [PubMedの]
- ケーシーBJ、トーマスKM、ウェールズのTF、Badgaiyan RD、Eccard CH、ジェニングスJRなど。 機能的磁気共鳴画像法による反応矛盾、注意選択、および期待の解離 国立科学アカデミー講演論文集。 2000b;97:8728-8733。
- Casey BJ、Tottenham N、Fossella J. Clinical、イメージング、病変、および認知制御モデルへの遺伝的アプローチ。 発達心理生物学 2002b;40:237-254。 [PubMedの]
- Casey BJ、Tottenham N、Liston C、Durston S.発達中の脳のイメージング:認知発達について何を学びましたか? 認知科学の動向。 2005。9:104-110。
- ケーシーBJ、トレーナーRJ、オレンディJL、シューベルトAB、Nystrom LE、ギードドJNなど。 go-no-go課題遂行中の前頭前野の活性化に関する発達的機能的MRI研究 認知神経科学ジャーナル。 1997。9:835-847。
- 開発中に柔軟なルールの使用を仲介するクローンE、Donohue S、Honomichl R、Wendelken C、Bunge S. Brain領域。 神経科学ジャーナル。 2006。26:11239-11247。 [PubMedの]
- デンプスターFN 耐干渉性基本的加工メカニズムにおける発達上の変化 で:ハウML、Pasnak R、編集者。 認知発達における新テーマ1:基礎 ニューヨーク:スプリンガー。 1993 pp。3 – 27。
- 菱形A.乳児のAB行動に示されるように、行動を誘導するために想起を使用する能力の発達。 小児発達。 1985。56:868-883。 [PubMedの]
- Durston S、Davidson MC、Thomas KM、Worden MS、Tottenham N、Martinez Aなど。 迅速な混合試験事象関連fMRIを用いた矛盾と反応競合のパラメータ操作 Neuroimage。 2003。20:2135-2141。 [PubMedの]
- Durston S、Davidson MC、Tottenham N、Galvan A、Spicer J、Fossella Jなど。 発達に伴うびまん性から局所性皮質活動への移行 発生科学 2006。1:18-20。 [PubMedの]
- Durston S、Hulshoff Pol HE、Casey BJ、Giedd JN、Buitelaar JK、van Engeland H.発生中の人間の脳の解剖学的MRI:何を学んだか? アメリカ小児青年期精神医学アカデミーのジャーナル。 2001。40:1012-1020。
- Eaton LK、Kinchen S、Ross J、Hawkins J、Harris WA、Lowry Rなど。 青少年リスク行動サーベイランス - 米国、2005、サーベイランス要約。 罹患率および死亡率週次報告。 2006。55:1-108。 [PubMedの]
- Eigsti IM、Zayas V、Mischel W、Shoda Y、Ayduk O、Dadlani MBなど。 就学前から思春期後期および若年成人までの認知制御の予測 心理科学 2006。17:478-484。 [PubMedの]
- Ernst M、Nelson EE、Jazbec S、McClure EB、Monk CS、Leibenluft Eなど。 扁桃体核および側坐核は、成人および青年における受入および増量の省略に応答して側坐する。 Neuroimage。 2005。25:1279-1291。 [PubMedの]
- Eshel N、Nelson EE、Blair RJ、Pine DS、Ernst M.成人および青年における選択の神経基質:腹側外側前頭前野および前帯状皮質の発達。 神経心理学 2007。45:1270-1279。 [PMCフリーの記事] [PubMedの]
- Flavell JH、Feach DR、Chinsky JM。 年齢の関数としての記憶課題における自発的口頭リハーサル 小児発達。 1966。37:283-299。 [PubMedの]
- ガルヴァンA、野ウサギTA、パラCE、ペンJ、フォスH、グラバーGなど。 眼窩前頭皮質と比較した側坐骨の初期の発達は、青年期におけるリスクテイク行動の根底にある可能性があります。 神経科学ジャーナル。 2006。26:6885-6892。 [PubMedの]
- ガルヴァンA、ウサギT、フォスH、グラバーG、ケーシーBJ。 危険を冒すと思春期の脳誰が危険にさらされているのか 発生科学 2007。10:F8-F14。 [PubMedの]
- 青年期および成人期におけるGardener M、Steinberg L. Peerのリスクテイキング、リスク選好、およびリスクの高い意思決定への影響:実験的研究。 発達心理学。 2005。41:625-635。 [PubMedの]
- ギードJN。 青年期脳の構造的磁気共鳴イメージング ニューヨーク科学アカデミーの年鑑。 2004。1021:77-85。 [PubMedの]
- Giedd JN、Blumenthal J、Jeffries NO、Castellanos FX、Liu H、Zijdenbos Aなど。 小児期および青年期における脳の発達縦断的MRI研究 Nature Neuroscience。 1999。2:861-863。
- Giedd JN、Snell JW、Lange N、Rajapakse JC、Casey BJ、Kozuch PLなど。 ヒトの脳発達の定量的磁気共鳴画像法:年齢4〜18。 大脳皮質。 1996。6:551-560。 [PubMedの]
- Gogtay N、Giedd JN、Lusk L、Hayashi KM、Greenstein D、Vaituzis ACなど。 小児期初期の成人期までのヒト皮質発達の動的マッピング アメリカ合衆国国立科学アカデミーの議事録。 2004。101:8174-8179。 [PMCフリーの記事] [PubMedの]
- Graber JA、Brooks-Gunn J. Puberty。 で:Blechman EA、Brownell KD、編集者。 行動医学と女性総合ハンドブック。 ニューヨーク、ニューヨーク:ギルフォードプレス。 1998 pp。51 – 58。
- 野ウサギTA、Voss HU、グラバーGH、ケーシーBJ。 思春期の脳と不安や鬱病の潜在的なリスク。 2007a 公開用に送信されました。
- 野ウサギTA、Voss HU、グラバーGH、ケーシーBJ。 前頭前野と皮質下大脳辺縁系の間の競合は、青年期の感情的反応の根底にあります。 2007b 公開用に送信されました。
- Harnishfeger KK、Bjorkland F.抑制メカニズムの個体発生:認知発達への新たなアプローチ。 で:ハウML、Pasnek R、編集者。 認知発達における新たなテーマ Vol。 1 ニューヨーク:Springer-Verlag。 1993 pp。28 – 49。
- Hikosaka K、Watanabe M.サルの眼窩前部および外側前頭前野ニューロンの活動の遅延は、報酬によって異なります。 大脳皮質。 2000。10:263-271。 [PubMedの]
- フッテンロッカーPR。 ヒト前頭皮質のシナプス密度 - 発生的変化と加齢の影響 脳の研究 1979。163:195-205。 [PubMedの]
- ハイマンSE、Malenka RC。 中毒と脳強迫の神経生物学とその持続 Nature Reviews神経科学。 2001。2:695-703。
- Jernigan TL、Zisook S、Heaton RK、Moranville JT、Hesselink JR、Braff DL。 統合失調症におけるレンチキュラー核と大脳皮質の磁気共鳴画像法異常 一般精神医学のアーカイブ。 1991。48:811-823。
- キーピングDP、ボビットBL。 精神能力の認知処理要素における個人差および発達差 小児発達。 1978。49:155-167。
- Kelley AE、Schochet T、Landry C. ニューヨーク科学アカデミーの年鑑。 2004。1021:27-32。 [PubMedの]
- Knutson B、Adams CM、Fong GW、Hommer D.金銭的報酬の増加を期待して、側坐核を選択的に募集します。 神経科学ジャーナル。 2001。21:RC159。 [PubMedの]
- Kuhnen CM、KnutsonB。金融リスクテイクの神経基盤。 ニューロン。 2005。47:763-770。 [PubMedの]
- Laviola G、Adriani W、Terranova ML、Gerra G.人間の青年および動物モデルにおける精神刺激薬に対する脆弱性の心理生物学的危険因子。 神経科学と生物行動学的レビュー 1999。23:993-1010。 [PubMedの]
- Laviola G、Macri S、Morley-Fletcher S、Adriani W.青年期マウスにおける抽象的リスクテイク行動心理生物学的決定要因と初期のエピジェネティックな影響。 神経科学と生物行動学的レビュー 2003。27:19-31。 [PubMedの]
- Liston C、Watts R、Tottenham N、Davidson MC、Niogi S、Ulug AMなど。 前線条体の微細構造は認知制御の効率的な動員を調節する 大脳皮質。 2005。16:553-560。 [PubMedの]
- ルナB、スウィーニーJA。 協調的脳機能の出現反応抑制の発達に関するFMRI研究 ニューヨーク科学アカデミーの年鑑。 2004。1021:296-309。 [PubMedの]
- Luna B、Thulborn KR、Munoz DP、Merriam EP、Garver KE、Minshew NJなど。 広く分布している脳機能の成熟は認知発達を助長する。 Neuroimage。 2001。13:786-793。 [PubMedの]
- マシューズSC、等。 危険を伴う意思決定中の側坐核の選択的活性化 Neuroreport。 2004。15:2123-2127。 [PubMedの]
- May JC、Delgado MR、Dahl RE、Stenger VA、Ryan ND、Fiez JAなど。 小児および青年における報酬関連脳回路の事象関連機能的磁気共鳴イメージング 生物学的精神医学 2004。55:359-366。 [PubMedの]
- McClure SM、Laibson DI、Loewenstein G、Cohen JD。 別々の神経系は即時の金銭的報酬を重んじる。 科学。 2004。306:503-507。 [PubMedの]
- Miller EK、コーエンJD。 前頭前野皮質機能の統合理論 神経科学の年次レビュー。 2001。24:167-202。
- Mischel W、Shoda Y、Rodriguez MI。 子供の満足の遅れ。 科学。 1989。244:933-938。 [PubMedの]
- Monk CS、McClure EB、Nelson EE、Zarahn E、Bilder RM、Leibenluft Eなど。 感情的表情への注意関連脳の関与における青年期の未熟 Neuroimage。 2003。20:420-428。 [PubMedの]
- モンタギューPR、バーンズGS。 神経経済学と評価の生物学的基盤 ニューロン。 2002。36:265-284。 [PubMedの]
- Moses P、Roe K、Buxton RB、Wong EC、Frank LR、Stiles J.。 Neuroimage。 2002。16:415-424。 [PubMedの]
- 宗方Yさん、Yerysさん。 今、すべて一緒に:知識と行動の間の乖離が消えたとき。 心理科学 2001。12:335-337。
- Nagy Z、Westerberg H、Klingberg T.白質の成熟は、子供の頃の認知機能の発達に関連しています。 認知神経科学ジャーナル。 2004。16:1227-1233。 [PubMedの]
- O'Doherty J、Kringelbach ML、Rolls ET、Hornak J、Andrews C.人間の眼窩前頭皮質における抽象的な報酬と罰表現。 ネイチャー神経症。 2001。4:95-102。 [PubMedの]
- オドハティJP。 人間の脳における報酬表現と報酬関連学習:ニューロイメージングからの洞察 神経生物学における最近の意見 2004。14:769-776。
- パスカルレオーネJA。 ピアジェの発達段階における移行の数学モデル Acta Psychologica 1970。32:301-345。
- ペパイナS、カニヤードB、ベリッジKC、オルドリッジJW、チワンX。高ドーパミン作動性変異マウスは甘い報酬を得るのに「欲しい」が高いが「好き」ではない。 神経科学ジャーナル。 2003。23:9395-9402。 [PubMedの]
- Reyna VF、Farley F.思春期の意思決定におけるリスクと合理性:理論、実践、そして公共政策への影響。 公共の利益における心理科学 2006。7:1-44。
- ローゼンバーグDR、ルイスDA。 サルの前頭前野および運動皮質のドーパミン作動性神経支配の出生後の成熟チロシンヒドロキシラーゼ免疫組織化学的分析 比較神経学のジャーナル。 1995。358:383-400。 [PubMedの]
- ルビアK、オーバーメイヤーS、テイラーE、ブラムマーM、ウィリアムズSC、シモンズAなど。 年齢による機能的前頭化fMRIによる神経発達軌道のマッピング 神経科学と生物行動学的レビュー 2000。24:13-19。 [PubMedの]
- Schlaggar BL、ブラウンTT、Lugar HM、Visscher KM、Miezin FM、Petersen SE。 単一単語の処理における成人と学齢期の子供の間の機能的神経解剖学的差異 科学。 2002。296:1476-1479。 [PubMedの]
- シュルツW.行動理論と報酬の神経生理学 心理学の年次レビュー。 2006。57:87-115。
- Sowell ER、Peterson BS、Thompson PM、Welcome SE、Henkenius AL、Toga AW。 人間の寿命にわたる皮質変化のマッピング Nature Neuroscience。 2003。6:309-315。
- Sowell ER、Thompson PM、Holmes CJ、Jernigan TL、Toga AW。 前頭および線条体領域における青年期後の脳成熟のin vivo証拠 Nature Neuroscience。 1999。2:859-861。
- Sowell ER、Thompson PM、Toga AW。 寿命の間の人間の皮質における変化のマッピング。 神経科学者 2004。10:372-392。 [PubMedの]
- スピアLP。 思春期の脳と加齢に伴う行動の発現 神経科学と生物行動学的レビュー 2000。24:417-463。 [PubMedの]
- Steinberg L.思春期のリスクテイク:何が変わり、そしてなぜ? ニューヨーク科学アカデミーの年鑑。 2004。1021:51-58。 [PubMedの]
- 青年期におけるSteinberg L.のリスクテイク脳と行動科学からの新しい展望 心理科学における現在の方向 2007。16:55-59。
- Steinberg L.思春期のリスクテイキングに関する社会神経科学的展望 発達レビュー 2008。28:78-106。 [PMCフリーの記事] [PubMedの]
- Tamm L、Menon V、Reiss AL。 反応抑制に関連した脳機能の成熟 アメリカ児童青年精神医学アカデミー。 2002。41:1231-1238。 [PubMedの]
- トーマスKM、ハントRH、Vizueta N、ソマーT、ダーストンS、ヤンY、等。 暗黙のシーケンス学習における発達上の違いの証拠小児と成人のFMRI研究 認知神経科学ジャーナル。 2004。16:1339-1351。 [PubMedの]
- Turkeltaub PE、Gareau L、花DL、Zeffiro TA、Eden GF。 読書のための神経機構の開発 Nature Neuroscience。 2003。6:767-773。
- Volkow ND、李TK。 薬物中毒行動の神経生物学は衰退した Nature Reviews神経科学。 2004。5:963-970。
- Yurgelun-Todd D.青年期における感情的および認知的変化。 神経生物学における最近の意見 2007。17:251-257。 [PubMedの]
- Zald DH、Boileau I、El-Dearedy W、Gunn R、McGlone F、Dichter GSなど。 金銭的報酬タスク中のヒト線条体におけるドーパミン伝達 神経科学ジャーナル。 2004。24:4105-4112。 [PubMedの]