コメント:後の研究で明らかになるように、DeltaFosBは薬物依存症と行動依存症の両方に共通の分子スイッチです。 これは転写因子であり、どの遺伝子がオンまたはオフになるかに影響します。 他の場所で述べられているように、中毒性のある薬物は通常のメカニズムを乗っ取るだけです。 だから、行動中毒が存在できないと示唆するのはばかげています。
Proc Natl Acad Sci US A. 2001 9月25; 98(20):11042 - 11046。
土井:10.1073 / pnas.191352698。
Eric J. Nestler *、Michel Barrot、およびDavid W. Self
テキサス大学サウスウェストメディカルセンター、テキサス州ダラス、精神神経科および基礎神経科学センター5323-75390
抽象
薬物依存症の特徴である行動異常の一部が長期間持続することから、神経遺伝子発現の調節が、乱用薬物が依存症状態を引き起こす過程に関与している可能性が示唆されている。転写因子ΔFosBが、乱用薬物が依存症表現型に寄与する脳内の比較的安定した変化を引き起こすメカニズムの一つであるという証拠が増えつつある。Fosファミリー転写因子の一員であるΔFosBは、多くの種類の乱用薬物を繰り返し投与すると、側坐核および背側線条体(依存症に重要な脳領域)のニューロンのサブセット内に蓄積する。同様のΔFosBの蓄積は強迫的なランニング後にも起こることから、ΔFosBは多くの種類の強迫行動に反応して蓄積する可能性があることが示唆される。重要なことに、ΔFosBはその並外れた安定性のため、ニューロン内に比較的長期間持続する。したがって、ΔFosBは、薬物曝露が停止した後も長く持続する遺伝子発現の変化を開始し、維持する分子メカニズムを表している。ΔFosBまたはそのタンパク質のドミナントネガティブ阻害剤を過剰発現する誘導性トランスジェニックマウスを用いた研究は、ΔFosBが乱用薬物の行動への影響に対する感受性を高め、おそらく薬物探索行動を増加させるという直接的な証拠を提供している。この研究は、ΔFosBが持続的な「分子スイッチ」の一種として機能し、急性薬物反応を徐々に比較的安定した適応へと変換し、依存症の根底にある長期的な神経および行動の可塑性に寄与するという見解を支持するものである。
依存症研究は、乱用薬物が脳を変化させて依存症を特徴付ける行動異常を引き起こす複雑な方法を理解することに焦点を当てています。 この分野における重大な課題の1つは、特に長命であるそれらの行動異常を説明するために比較的安定した薬物誘発性の脳内変化を同定することである。 例えば、人間の常習者は何年もの禁酒の後でさえも再発の危険性が高いかもしれません。
これらの行動異常の安定性から、少なくとも部分的には遺伝子発現の変化を介して引き起こされている可能性が示唆されている(1~3)。この見解によれば、乱用薬物への繰り返し曝露は、薬物に感受性のある脳内の特定のシナプスにおける伝達を繰り返し阻害する。このような阻害は最終的に細胞内メッセンジャーカスケードを介して核にシグナルを送り、そこで特定の遺伝子の発現の変化を最初に開始し、その後維持する。シグナル伝達経路が遺伝子発現に影響を与える主要なメカニズムは、遺伝子の調節領域に結合して転写を修飾するタンパク質である転写因子の調節である。
したがって、依存症研究の目的の1つは、乱用薬物の長期投与後に依存症に関与すると考えられる脳領域で変化する転写因子を同定することです。 このような転写因子は過去10年間にいくつか同定されています(1〜6)。 このレビューの焦点は、ΔFosBと呼ばれる1つの特定の転写因子にあります。
乱用薬物によるΔFosBの誘導
fosB遺伝子によってコードされるΔFosBは、c − Fos、FosB、FraXNUMX、およびFraXNUMX(XNUMX)も含む転写因子のFosファミリーの一員である。 これらのFosファミリータンパク質は、Junファミリータンパク質(c-Jun、JunB、またはJunD)とヘテロ二量体化して、AP-1部位(コンセンサス配列:TGAC / GTCA)に結合する活性型AP-2(アクチベータータンパク質-7)転写因子を形成する。それらの転写を調節する特定の遺伝子のプロモーター。
これらのFosファミリータンパク質は、多くの乱用薬物の急性投与後に特定の脳領域で急速かつ一過性に誘発されます(図1)(8〜11)。 顕著な領域は、側坐核および背側線条体であり、これらは薬物に対する行動反応、特にそれらのやりがいおよび自発運動活性化作用の重要な媒介物質である(12、13)。 これらのタンパク質は薬物投与後数時間以内に基礎レベルに戻る。
図1
乱用薬物に対する反応として、ΔFosB の段階的な蓄積と他の Fos ファミリー タンパク質の急速かつ一過性の誘導を示す図。 (A) オートラジオグラムは、急性刺激 (単回薬物曝露後 1 ~ 2 時間) と慢性刺激 (反復薬物曝露後 1 日) によるこれらの様々なタンパク質の誘導の差異を示している。(B) 乱用薬物の急性投与により、側坐核および背側線条体ニューロンにおいて、Fos 様タンパク質 [c-Fos (52 ~ 58 kDa アイソフォーム)、FosB (46 ~ 50 kDa アイソフォーム)、ΔFosB (33 kDa アイソフォーム)、および Fra1 または Fra2 (40 kDa)] の複数の波が誘導される。また、生化学的に修飾された ΔFosB (35 ~ 37 kDa) アイソフォームも誘導される。それらもまた、急性薬物投与後に(低レベルではあるものの)誘導されるが、安定性のため脳内に長期間留まる。(C)薬物を繰り返し投与(例えば1日2回)すると、各急性刺激によって安定なΔFosBアイソフォームが低レベルで誘導される。これは、各急性刺激によって誘導されるΔFosBを示す下側の重なり合う線で示されている。その結果、慢性治療の過程で繰り返し刺激を受けると、ΔFosBの総レベルが徐々に増加する。これは、グラフの増加階段線で示されている。
乱用薬物の慢性投与後には、非常に異なる反応が見られる(図 1)。ΔFosB の生化学的に修飾されたアイソフォーム(分子量 35~37 kDa)は、薬物への反復曝露後、同じ脳領域内に蓄積するが、他のすべての Fos ファミリーメンバーは耐性を示す(つまり、最初の薬物曝露と比較して誘導が減少する)。このような ΔFosB の蓄積は、コカイン、モルヒネ、アンフェタミン、アルコール、ニコチン、フェンシクリジン e で観察されている(11、14~18)。この誘導は、これらの脳領域に存在するダイノルフィン/サブスタンス P 含有中型有棘ニューロンのサブセットに選択的であるという証拠がいくつかある(15、17)が、これを確実に確立するには、さらなる研究が必要である。 ΔFosBの35~37kDaのアイソフォームは、主にJunDと二量体を形成し、これらの脳領域内で活性で持続的なAP-1複合体を形成する(19、20)。これらのΔFosBアイソフォームは、半減期が非常に長いため、慢性的な薬物曝露によって蓄積し(21)、薬物投与中止後少なくとも数週間はニューロン内に残存する。興味深いことに、これらのΔFosBアイソフォームは、即時初期遺伝子(fosB)の非常に安定した産物である。ΔFosBアイソフォームの安定性は、薬物誘発性の遺伝子発現変化が、比較的長い薬物離脱期間にもかかわらず持続する新たな分子メカニズムを提供する。
側坐核は乱用薬物の有益な効果において重要な役割を果たすが、それは通常、食物、飲み物、性別、および社会的相互作用などの天然の強化剤に対する反応を調節することによって機能すると考えられている(12、13)。 結果として、他の強迫行動(例えば、病的過食、ギャンブル、運動など)におけるこの脳領域の可能な役割にかなりの関心が寄せられています。 この理由のために、我々は、ΔFosBが強制走行の動物モデルにおいて調節されるかどうかを調べた。 実際、ΔFosBの安定な35-to-37-kDaアイソフォームはラットの側坐核内で選択的に誘導され、強制的な走り行動を示します†。
安定なΔFosBアイソフォームの生化学的同一性
上記のように、乱用薬物または強制薬物療法の慢性投与後に蓄積するΔFosBアイソフォームは、35〜37 kDaの分子量を示す。 それらは、単一薬物曝露後に急速に、しかし一時的に誘導されるΔFosBの33-kDaアイソフォームと区別することができる(1、14、19)。 現在の証拠は、22-kDaアイソフォームがタンパク質の天然型であり、それがより安定な33〜35-kDa産物(37、19)を形成するように改変されていることを示唆している。 しかしながら、不安定なXNUMX − kDaアイソフォームを安定なXNUMX − 〜XNUMX − kDaアイソフォームに変換する生化学的修飾の性質は不明のままである。 リン酸化が原因であり得ると推測されている(XNUMX)。 例えば、ΔFosBの誘導は、DARPP-21、線条体濃縮タンパク質(33、35)を欠くマウスにおいて減弱する。 DARPP - XNUMXは、プロテインホスファターゼ-XNUMXおよびプロテインキナーゼA(XNUMX、XNUMX)の触媒活性を調節するので、安定なΔFosBアイソフォームの正常な蓄積に対するこのタンパク質の必要性は、これらの安定な生成物の生成におけるリン酸化の役割の可能性を示唆する。
薬物乱用に対する行動可塑性におけるΔFosBの役割
薬物依存におけるΔFosBの役割についての知見は、主に、成体動物の側坐核および他の線条体領域でΔFosBを選択的に誘導できるトランスジェニックマウスの研究から得られた(27、28)。重要なことに、これらのマウスは、薬物がタンパク質を誘導すると考えられているダイノルフィン/サブスタンスP含有中型有棘ニューロンでΔFosBを選択的に過剰発現する。多くの点で慢性薬物曝露後の動物に類似するΔFosB過剰発現マウスの行動表現型は、表1にまとめられている。マウスは、急性および慢性投与後のコカインに対する運動反応の増強を示す(28)。また、これらの動物は場所条件付け試験においてコカインとモルヒネの報酬効果に対する感受性が高まり(11、28)、ΔFosBを過剰発現しない同腹仔よりも少ない量のコカインを自己投与する。‡ 対照的に、これらの動物はコカインに対する正常な条件付け運動感作とモリス水迷路における正常な空間学習を示す(28)。これらのデータは、ΔFosBが動物のコカインおよびおそらく他の乱用薬物に対する感受性を高め、薬物に対する比較的長期にわたる感作のメカニズムを表している可能性があることを示している。
 線条体
| 急性および反復コカイン投与に反応して自発運動が増加する。 |
| プレースコンディショニングアッセイにおけるコカインとモルヒネに対するやりがいのある反応 |
| 低用量コカインの自己投与量の増加。 |
| プログレッシブレシオアッセイにおけるコカインの動機づけの向上 |
| アルコールに対する抗不安反応の増加 |
| 強制的なランニング行動を増やしました。 |
参考文献28および29のデータに基づく。†‡§¶
側坐核 - 背側線条体におけるΔFosBにより媒介される行動可塑性
さらに、ΔFosBの効果は、薬物感受性の調節そのものにとどまらず、依存症プロセスに関連するより複雑な行動にまで及ぶ可能性があるという予備的な証拠がある。ΔFosBを発現するマウスは、漸進比率自己投与試験においてコカインを自己投与するために努力を惜しまないことから、ΔFosBは動物をコカインの誘因動機付け特性に敏感にし、それによって薬物離脱後の再発傾向につながる可能性があることが示唆される。‡ ΔFosBを発現するマウスは、アルコールの抗不安作用も増強する§。この表現型は、ヒトにおけるアルコール摂取量の増加と関連付けられている。これらの初期の知見を総合すると、ΔFosBは乱用薬物に対する感受性を高めることに加えて、薬物探索行動を促進する行動の質的変化をもたらすことが示唆される。したがって、ΔFosBは、依存状態の重要な側面を開始し、維持するのに役立つ持続的な「分子スイッチ」として機能する可能性がある。現在調査中の重要な疑問は、薬物曝露中のΔFosBの蓄積が、ΔFosBレベルが正常化した後でも、長期の離脱期間後に薬物探索行動を促進するかどうかである(下記参照)。
側坐核および背側線条体内でΔFosBを選択的に過剰発現する成体マウスは、対照同腹仔と比較して強迫的な走行行動がより顕著である。† これらの観察結果は、これらのニューロン内でのΔFosBの蓄積が、習慣記憶および強迫行動の形成と維持においてより一般的な役割を果たしている可能性を示唆しており、おそらくこれらのニューロンが機能する神経回路の有効性を強化することによって、その役割を果たしていると考えられる。
ΔFosBは、コカインに慢性的に曝露されると、側坐核と背側線条体以外の特定の脳領域に蓄積する。これらの領域の中で特に顕著なのは、扁桃体と内側前頭前皮質である(15)。現在の研究の主な目的は、これらの領域におけるΔFosB誘導が依存症表現型にどのように寄与しているかを理解することである。
fosBノックアウトマウスに関する初期の研究により、これらの動物はコカインの自発運動効果に対する感作を起こさないことが明らかになりました。これは、上記のΔFosB過剰発現マウスの発見と一致しています(22)。 ただし、fosB変異体は、コカインの急性効果に対する感受性の向上を示しました。これは、これらの他の発見と一致していません。 しかし、fosB変異体による所見の解釈は、これらの動物がΔFosBだけでなく完全長のFosBも欠いているという事実によって複雑になっています。 さらに、変異体は脳全体と発達の初期段階から両方のタンパク質を欠いています。 実際、より最近の研究は、ΔFosB過剰発現マウスからの結論を支持しています:側坐核および背側線条体において選択的にΔFosBのドミナントネガティブアンタゴニストとして作用するc-Junの短縮型変異体の誘導性過剰発現は、コカインの報酬効果に対する感受性の低下を示します.¶これらの発見は、構成的突然変異を有するマウスからの結果を解釈する際に使用しなければならない注意を強調し、成人の脳の可塑性の研究における誘導性および細胞型特異的突然変異を有するマウスの重要性を示しています。
ΔFosBの標的遺伝子
ΔFosBは転写因子であるため、おそらくこのタンパク質は他の遺伝子の発現の変化を通じて行動可塑性を引き起こすと考えられます。ΔFosBはfosB遺伝子の選択的スプライシングによって生成され、全長FosBに存在するC末端転写活性化ドメインの一部を欠いています。そのため、当初はΔFosBは転写抑制因子として機能すると提唱されていました(29)。しかし、細胞培養での研究により、ΔFosBは使用する特定のAP-1部位に応じてAP-1を介した転写を誘導または抑制できることが明確に示されています(21、29~31)。全長FosBは特定のプロモーター断片に対してはΔFosBと同じ効果を発揮しますが、他のプロモーター断片に対しては異なる効果を発揮します。ΔFosBとFosBのこれらの多様な作用の根底にあるメカニズムを理解するには、さらなる研究が必要です。
私たちのグループは、ΔFosBの標的遺伝子を特定するために3つのアプローチを使用しました。 5つは候補遺伝子アプローチです。 側坐核におけるグルタミン酸作動性伝達の重要な役割を考慮して、当初、α-アミノ-4-ヒドロキシ-2-メチル-2-イソキサゾールプロピオン酸(AMPA)グルタメート受容体を推定標的と見なしました。 これまでの研究により、特定のAMPAグルタミン酸受容体サブユニットであるGluR2がΔFosBの真正な標的である可能性があることが示されています(図28)。 GluR2の発現は、他のAMPA受容体サブユニットの発現ではなく、ΔFosBの過剰発現時に側坐核(背側線条体ではない)で増加し(1)、ドミナントネガティブ変異体の発現はコカインがタンパク質を誘導する能力を弱めます。さらに、GluR28遺伝子のプロモーターには、ΔFosBに結合するコンセンサスAP-2部位が含まれています(28)。 側坐核におけるGluR2の過剰発現は、ウイルスを介した遺伝子導入を使用することにより、コカインの報酬効果に対する動物の感受性を高め、それによってΔFosB発現マウスに見られる表現型の一部を模倣します(32)。 GluR2を含むAMPA受容体は全体的なコンダクタンスの低下とCa2 +透過性の低下を示すため、GluRXNUMXの誘導は、慢性コカイン投与後の側坐核ニューロンのAMPA受容体アゴニストに対する電気生理学的感受性の低下を説明できます(XNUMX)。 興奮性入力に対するこれらのニューロンの応答性の低下は、乱用薬物への応答を強化する可能性があります。 ただし、側坐核のドーパミン作動性およびグルタミン酸作動性シグナルが習慣性行動を調節する方法は不明のままです。 これには神経回路レベルの理解が必要ですが、これはまだ利用できません。
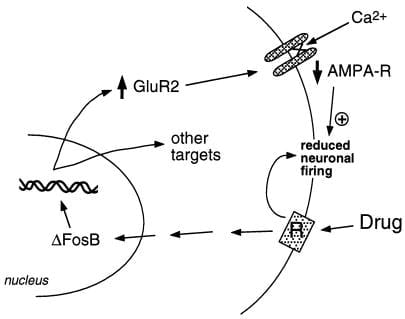
図2
AMPAグルタミン酸受容体サブユニットGluR2は、ΔFosBの標的候補である。図は、ΔFosBを介したGluR2の誘導が、側坐核ニューロンの生理的応答性を変化させ、乱用薬物に対する感受性を高める可能性を示している。このスキームによれば、乱用薬物は側坐核ニューロンの抑制を介して急性強化効果を発揮する。繰り返し曝露されると、薬物はΔFosBを誘導し、ΔFosBはGluR2を含む多数の標的遺伝子を制御する。これにより、GluR2サブユニットを含む側坐核ニューロン上のAMPA受容体(AMPA-R)の割合が増加し、AMPA電流全体とCa2+電流が減少する。この興奮性の低下により、ニューロンは薬物の急性抑制効果、ひいては薬物の強化効果に対してより敏感になる可能性がある。
ΔFosB のもう 1 つの推定標的は、ダイノルフィンをコードする遺伝子です。前述のように、ダイノルフィンは、ΔFosB の誘導を示す側坐核中型有棘ニューロンのサブセットで発現しています。ダイノルフィンは細胞間フィードバック ループで機能しているようです。その放出は、側坐核のドーパミン神経終末および腹側被蓋野の細胞体と樹状突起に存在する κ オピオイド受容体を介して、中型有棘ニューロンを神経支配するドーパミン作動性ニューロンを抑制します(図 3) (33–35)。この考えは、κ 受容体アゴニストをこれら 2 つの脳領域のいずれかに投与すると、薬物報酬を減少させる能力と一致しています(35)。
最近の研究では、ΔFosBがダイノルフィンの発現を減少させることが示されており、これはΔFosB誘導時に見られる報酬メカニズムの増強に寄与する可能性がある。興味深いことに、別の薬物調節転写因子であるCREB(cAMP応答配列結合タンパク質)(2、3)は逆の効果を発揮する。すなわち、側坐核におけるダイノルフィンの発現を誘導し、コカインとモルヒネの報酬特性を低下させる(4)。
薬物投与後、CREBの薬物誘発性活性化は急速に消失するため、CREBとΔFosBによるダイノルフィンのこのような相互調節は、離脱の初期段階と後期段階で起こる相互的な行動変化を説明できる可能性がある。離脱の初期段階では、否定的な感情症状と薬物感受性の低下が優勢であり、後期の時点では、薬物の報酬効果とインセンティブ動機付け効果に対する感受性の亢進が優勢となる。
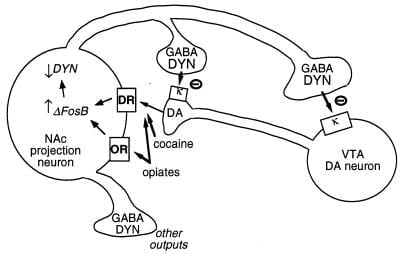
図3
ダイノルフィンはΔFosBの推定標的である。図は、ダイノルフィン(DYN)を発現する側坐核(NAc)GABA作動性投射ニューロンの一種を神経支配する腹側被蓋野(VTA)ドーパミン(DA)ニューロンを示す。ダイノルフィンはこの回路でフィードバック機構として機能する。NAcニューロンの終末から放出されたダイノルフィンは、DAニューロンの神経終末および細胞体に存在するκオピオイド受容体に作用して、その機能を阻害する。ΔFosBは、ダイノルフィン発現を阻害することにより、このフィードバックループを下方制御し、乱用薬物の報酬特性を増強する可能性がある。CREBのこのシステムに対する逆効果は示されていない。CREBはダイノルフィン発現を増強し、それによって乱用薬物の報酬特性を減弱させる(4)。GABA、γ-アミノ酪酸;DR、ドーパミン受容体;または、オピオイド受容体。
ΔFosBの標的遺伝子を同定するために使用される36番目のアプローチには、DNAマイクロアレイ分析が含まれます。 ΔFosBの誘導性過剰発現は、側坐核における多数の遺伝子の発現を増加または減少させます(5)。 これらの遺伝子のそれぞれをΔFosBの生理学的標的として検証し、依存症の表現型への寄与を理解するには、現在かなりの作業が必要ですが、重要な標的の5つはCdk5(サイクリン依存性キナーゼ-37)のようです。 したがって、Cdk5は、マイクロアレイを使用してΔFosBによって調節されるものとして最初に同定され、その後、慢性的なコカイン投与後に側坐核および背側線条体で誘導されることが示されました(1)。 ΔFosBは、遺伝子のプロモーター内に存在するAP-36部位を介してcdk5遺伝子を活性化します(5)。 一緒に、これらのデータは、コカインがΔFosBを介してこれらの脳領域でCdk32発現を誘導するスキームをサポートしています。 Cdk37の誘導は、Cdk1によるリン酸化の際にプロテインホスファターゼ-5の阻害剤からプロテインキナーゼAの阻害剤に変換されるDARPP-26(XNUMX)のリン酸化の増加を介して、ドーパミン作動性シグナル伝達を少なくとも部分的に変化させるようです(XNUMX)。
薬物乱用に対する「永久的」可塑性の仲介におけるΔFosBの役割
ΔFosBシグナルは比較的長寿命ではあるものの、永続的ではない。ΔFosBは徐々に分解し、薬物離脱後1~2か月で脳内では検出されなくなるが、特定の行動異常はそれよりもはるかに長い期間持続する。したがって、ΔFosB自体がこれらの半永続的な行動異常を媒介できるとは考えにくい。依存症に伴う極めて安定した行動変化の根底にある分子適応を見つけることの難しさは、学習と記憶の分野で直面する課題と類似している。学習と記憶の洗練された細胞および分子モデルは存在するものの、今日まで、非常に安定した行動記憶を説明できるほど十分に長寿命な分子および細胞適応を特定することはできていない。実際、ΔFosBは、乱用薬物だけでなく、(病変を伴わない)その他のあらゆる撹乱に対しても、成人の脳で起こることが知られている最も長寿命の適応である。この矛盾を説明するために、依存症分野と学習・記憶分野の両方において、2つの提案がなされてきた。
一つの可能性として、ΔFosBや他の転写因子(CREBなど)を介して起こるような、より一時的な遺伝子発現の変化が、神経細胞の形態やシナプス構造のより長期的な変化を媒介しているということが考えられる。例えば、長期増強中の海馬錐体ニューロンにおけるグルタミン酸作動性シナプスの有効性の増加に伴い、樹状突起棘の密度(特に二頭棘の増加)が増加する(38~40)。これは、側坐核の中型有棘ニューロンのレベルで媒介されるコカインに対する行動感受性の増強と並行している(41)。このような構造変化が、行動の非常に安定した変化を説明できるほど十分に長期にわたるかどうかは不明であるが、後者は少なくとも1ヶ月間の薬物離脱期間中持続する。最近の証拠は、ΔFosB およびそれによる Cdk5 の誘導が、側坐核における薬物誘発性シナプス構造変化のメディエーターの 1 つである可能性を示唆している (図 4)。‡‡ したがって、側坐核に Cdk5 阻害剤を注入すると、コカインの反復曝露によるこの領域の樹状突起スパイン密度の増加が阻止される。これは、脳に豊富に存在する Cdk5 が神経構造と成長を調節するという見解と一致する (参考文献 36 および 37 を参照)。神経形態のこのような変化は、ΔFosB シグナル自体よりも長く続く可能性があるが、これは証明されていない。
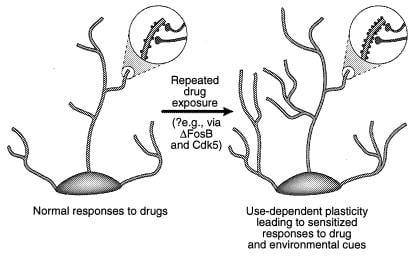
図4
乱用薬物による樹状構造の調節。 側坐核と前頭前野のコカインで観察されたように、乱用薬物への慢性的な曝露後のニューロンの樹状突起の拡大が示されています(41)。 拡大領域は樹状突起棘の増加を示しており、これは活性化された神経終末と関連して発生すると仮定されています。 樹状突起棘密度のこの増加は、ΔFosBとその結果としてのCdk5の誘導を介して媒介される可能性があります(テキストを参照)。 樹枝状構造のそのような変化は、いくつかの学習モデルで観察されたものと同様であり(例えば、長期増強)、乱用薬物または環境手がかりに対する長命の感作反応を媒介する可能性があります。 [参考文献の許可を得て複製。 3(Copyright 2001、Macmillian Magazines Ltd.)]。
別の可能性としては、転写因子(例えば、ΔFosB、CREB)の一過性誘導が、クロマチン修飾を介して遺伝子発現のより永続的な変化につながるということが考えられます。これらの転写因子や他の多くの転写因子は、それぞれ遺伝子近傍のヒストンのアセチル化または脱アセチル化を促進することによって、標的遺伝子の転写を活性化または抑制すると考えられています(42)。このようなヒストンのアセチル化および脱アセチル化は非常に速やかに起こるように見えますが、ΔFosBまたはCREBがヒストンアセチル化を制御する酵素機構に、より長く持続する適応をもたらす可能性もあります。ΔFosBまたはCREBは、発生中に起こる遺伝子転写の永続的な変化に関与しているクロマチンの他の修飾(例えば、DNAまたはヒストンメチル化)を調節することによって、遺伝子発現のより長く持続する変化を促進する可能性もあります(参考文献42および43を参照)。これらの可能性は依然として推測の域を出ないものの、乱用薬物(あるいはその他の何らかの撹乱)に対する一時的な適応が、本質的に生涯にわたる行動上の結果につながるメカニズムを提供する可能性がある。
参考情報
- ↵
- ネスラーEJ、
- BTさん、
- ウィドネルKL
(1993)ニューロン11:995 – 1006。
CrossRef Medline Web of Science
- ↵
- バークJD、
- ハイマンSE
(2000)ニューロン25:515 – 532。
CrossRef Medline Web of Science
- ↵
- ネスラーEJ
(2001)Nat Rev Neurosci 2:119 – 128。
CrossRef Medline Web of Science
- ↵
- Carlezon WA Jr、
- Thome J、
- オルソンVG、
- レーンラッドSB、
- ブロドキンES、
- Hiroi N、
- Duman RS、
- RLさん、
- ネスラーEJ
(1998)サイエンス282:2272 – 2275。
-
- オドノバンKJ、
- Tourtellotte WG、
- ミルブラントJ、
- バラバンJM
(1999)Neurosci 22のトレンド:167〜173。
CrossRef Medline Web of Science
- ↵
- マックラーSA、
- コルトラL、
- チャXY、
- Koebbe MJ、
- Fournier KM、
- バウワーズMS、
- カリバスPW
(2000)J Neurosci 20:6210 – 6217。
- ↵
- モーガンJI、
- カランT
(1995)Neurosci 18のトレンド:66〜67。
CrossRef Medline Web of Science
- ↵
- ヤングST、
- Porrino LJ、
- アイダローラMJ
(1991)Proc Natl Acad Sci USA 88:1291 – 1295。
-
- グレイビールAM、
- モラタラR、
- ロバートソンHA
(1990)Proc Natl Acad Sci USA 87:6912 – 6916。
-
- 希望B、
- コソフスキーB、
- ハイマンSE、
- ネスラーEJ
(1992)Proc Natl Acad Sci USA 89:5764 – 5768。
- ↵
- ケルズMB、
- ネスラーEJ
(2000)Curr Opin Neurol 13:715 – 720。
CrossRef Medline Web of Science
- ↵
- Koob GF、
- サンナPP、
- ブルームFE
(1998)ニューロン21:467 – 476。
CrossRef Medline Web of Science
- ↵
- ワイズRA
(1998)薬物アルコール依存症51:13 – 22。
CrossRef Medline Web of Science
- ↵
- BTさん、
- Nye HEさん、
- ケルズMB、
- 自己DW、
- Iadarola MJ、
- 中部屋Yさん、
- Duman RS、
- ネスラーEJ
(1994)ニューロン13:1235 – 1244。
CrossRef Medline Web of Science
- ↵
- Nye H、
- BTさん、
- ケルズM、
- Iadarola Mさん、
- ネスラーEJ
(1995)J Pharmacol Exp Ther 275:1671 – 1680。
-
- Nye HEさん、
- ネスラーEJ
(1996)Mol Pharmacol 49:636 – 645。
- ↵
- モラタラR、
- エリボルB、
- バジェホM、
- グレイビールAM
(1996)ニューロン17:147 – 156。
CrossRef Medline Web of Science
- ↵
- Pich EM、
- Pagliusi SR、
- テッサリM、
- タラボットアイエルD、
- Hooft van Huijsduijnen R、
- キアムレラC
(1997)サイエンス275:83 – 86。
- ↵
- 陳JS、
- Nye HEさん、
- ケルズMB、
- Hiroi N、
- 中部屋Yさん、
- BTさん、
- ネスラーEJ
(1995)Mol Pharmacol 48:880 – 889。
- ↵
- Hiroi N、
- ブラウンJ、
- はい、
- Saudou F、
- Vaidya VA、
- Duman RS、
- グリーンバーグME、
- ネスラーEJ
(1998)J Neurosci 18:6952 – 6962。
- ↵
- 陳J、
- ケルズMB、
- BTさん、
- 中部屋Yさん、
- ネスラーEJ
(1997)J Neurosci 17:4933 – 4941。
- ↵
- Hiroi N、
- ブラウンJ、
- ハイレC、
- はい、
- グリーンバーグME、
- ネスラーEJ
(1997)Proc Natl Acad Sci USA 94:10397 – 10402。
- ↵
- Fienberg AA、
- Hiroi N、
- メルメルシュタインP、
- ソングWJ、
- スナイナーGL、
- 西Aさん、
- ケラミーA、
- オキャラハンJP、
- ミラーD、
- コールDG、
- ら
(1998)サイエンス281:838 – 842。
- ↵
- Hiroi N、
- ファインバーグA、
- ハイレC、
- グリーンガードP、
- ネスラーEJ
(1999)Eur J Neurosci 11:1114 – 1118。
CrossRef Medline Web of Science
- ↵
- グリーンガードP、
- アレンPB、
- ネアンAC
(1999)ニューロン23:435 – 447。
CrossRef Medline Web of Science
- ↵
- ビブJA、
- スナイナーGL、
- 西Aさん、
- ヤンZ、
- マイヤーL、
- Fienberg AA、
- ツァイLH、
- クォンYT、
- ジローJA、
- Czernik AJ、
- ら
(1999)自然(ロンドン)402:669 – 671。
- ↵
- 陳JS、
- ケルズMB、
- Zeng GQ、
- 堺N、
- ステフェンC、
- Shockett PE、
- Picciotto M、
- Duman RS、
- ネスラーEJ
(1998)Mol Pharmacol 54:495 – 503。
- ↵
- ケルズMB、
- 陳JS、
- カルレゾンワシントン州、
- ウィスラーK、
- ギルデンL、
- ベックマン午前、
- ステフェンC、
- 張YJ、
- マロッティL、
- 自己SW、
- ら
(1999)自然(ロンドン)401:272 – 276。
- ↵
- ドブラザンスキーP、
- 野口Tさん、
- コヴァリーK、
- Rizzo CA、
- ラゾPS、
- ブラボーR
(1991)Mol Cell Biol 11:5470 – 5478。
-
- 中部屋Yさん、
- ネイサンズD
(1991)セル64:751 – 759。
CrossRef Medline Web of Science
- ↵
- 円J、
- 知恵RM、
- トラットナー私、
- Verma IM
(1991)Proc Natl Acad Sci USA 88:5077 – 5081。
- ↵
- ホワイトFJ、
- 胡XT、
- 張XF、
- オオカミ私
(1995)J Pharmacol Exp Ther 273:445 – 454。
- ↵
- ハイマンSE
(1996)ニューロン16:901 – 904。
CrossRef Medline Web of Science
-
- クリークMJ
(1997)Pharmacol Biochem Behav 57:551 – 569。
CrossRef Medline Web of Science
- ↵
- シッペンベルグTS、
- レアW
(1997)Pharmacol Biochem Behav 57:449 – 455。
CrossRef Medline Web of Science
- ↵
- 陳JS、
- 張YJ、
- ケルズMB、
- ステフェンC、
- Ang ES、
- Zeng L、
- ネスラーEJ
(2000)J Neurosci 20:8965 – 8971。
- ↵
- ビブJA、
- 陳JS、
- テイラーJR、
- Svenningsson Pさん、
- 西Aさん、
- スナイナーGL、
- ヤンZ、
- 佐川ZK、
- ネアンAC、
- ネスラーEJ、
- ら
(2001)自然(ロンドン)410:376 – 380。
- ↵
- ラッシャーC、
- ニコールRA、
- マレンカRC、
- ミュラーD
(2000)Nat Neurosci 3:545〜550。
CrossRef Medline Web of Science
-
- マリノウR、
- メインネンZF、
- 林Y
(2000)Curr Opin Neurobiol 10:352〜357。
CrossRef Medline Web of Science
- ↵
- Scannevin RH、
- フガニルRL
(2000)Nat Rev Neurosci 1:133 – 141。
CrossRef Medline Web of Science
ロビンソン、TE & コルブ、B. (1999) (1997) Eur。 J. Neurosci. 11、1598~ 1604 年。
- ↵
- キャリーM、
- スマイルST
真核生物における(2000)転写調節(Cold Spring Harbor Lab。Press、プレインビュー、NY)。
- ↵
- スペンサーバージニア州
- デイビーJR
(1999)Gene 240:1 – 12。
CrossRef Medline Web of Science
 Facebook
 Twitter
- Google+の
 シテライク
 おいしい
 ディグ
 Mendeley
この記事を引用しているHighWire Press主催の記事
- 重要な仲介者としてのΔFosBを有する一般的な神経可塑性メカニズムに及ぼす天然および薬物報酬法 J.Neurosci。 2013 33(8)3434-3442
- 薬物、犯罪、そして快楽同盟のエピジェネティクス 現代刑事司法ジャーナル2012 28(3)314-328
- 抽象
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- 抽象
- フルテキスト(HTML)
- 全文(PDF)
- モルヒネは後根神経節ニューロン由来のF1細胞において細胞外シグナル調節キナーゼ1 / 2を介してE 26様転写因子11 /血清応答因子経路を活性化する J.Pharmacol。 経験値 その 2012 342(1)41-52
- ゲートウェイ薬物の分子機構:コカインによるニコチンプライム遺伝子発現により開始されるエピジェネティック変化 サイトランスルメディア2011 3(107)107ra109
- マウスの中脳ドーパミンニューロンにおけるVGLUTX NUM Xの喪失後のスクロースおよびコカイン自己投与の増強およびキュー誘発薬物探索 J.Neurosci。 2011 31(35)12593-12603
- 慢性間欠性低酸素は中枢自律神経系領域において血圧とFosB /ΔFosBの発現を増加させる 午前 J.Physiol。 よろしく。 積分器 比較 フィジオル。 2011 301(1)R131-R139
- GPR37 / PAEL受容体の欠如は線条体AktおよびERK2リン酸化、ΔFosB発現、ならびにアンフェタミンおよびコカインに対する条件付き場所優先性を損なう FASEB J. 2011 25(6)2071-2081
- 初期アルコール曝露期間と分子耐性の持続性との間の関係は著しく非線形である J.Neurosci。 2011 31(7)2436-2446
- in vivo生物発光イメージングは腎血管性高血圧症のマウスの室傍核におけるレドックス制御活性化蛋白質‐1活性化を明らかにする 高血圧症2011 57(2)289-297
- ΔFosBの線条体過剰発現は慢性レボドパ誘発不随意運動を再現する J.Neurosci。 2010 30(21)7335-7343
- 主要精神病性障害における環境影響のエピジェネティックな媒介 統合失調症雄牛2009 35(6)1045-1056
- 生体脳におけるアンフェタミンへの慢性曝露の特異的検出のためのDNAベースのMRIプローブ J.Neurosci。 2009 29(34)10663-10670
- コカイン離脱ラットにおける樹状突起棘可塑性の変化 J.Neurosci。 2009 29(9)2876-2884
- ショウジョウバエの過剰発現スクリーンはAP-3依存性発生可塑性の調節因子としてのGSK-1β/ shaggyの神経細胞的役割を同定する 遺伝学2008 180(4)2057-2071
- 転写MRI:生きている脳の新しい見方 神経科学者2008 14(5)503-520
- 眼窩前頭皮質におけるΔFosB誘導はコカイン誘導認知機能障害に対する寛容を仲介する J.Neurosci。 2007 27(39)10497-10507
- グリア細胞株由来神経栄養因子変異マウスにおけるメタンフェタミン探索行動の回復に対する持続性の脆弱性 FASEB J. 2007 21(9)1994-2004
- 側坐核のΔFosBは食品強化機器の挙動と動機を調節する J.Neurosci。 2006 26(36)9196-9204
- リン酸化によるΔFosB安定性の調節。 J.Neurosci。 2006 26(19)5131-5142
- ドーパミンD1受容体含有細胞における変異NMDA受容体の発現はコカイン感作を予防しコカイン嗜好性を低下させる J.Neurosci。 2005 25(28)6651-6657
- D1ドーパミン受容体は間欠的モルヒネ投与後のラット線条体におけるΔFosB誘導を調節する J.Pharmacol。 経験値 その 2005 314(1)148-154
- 高い自発的なホイールランニング活動のために選択されたマウスの神経生物学 積分器 比較 Biol。 2005 45(3)438-455
- ラット視索上核および終板領域におけるc-FosおよびFosB染色に対する水分欠乏および水分補給の影響 午前 J.Physiol。 よろしく。 積分器 比較 フィジオル。 2005 288(1)R311-R321
- 骨芽細胞における機械的ストレスによるFosB /ΔFosB遺伝子の転写誘導 Jバイオケム2004 279(48)49795-49803
- 慢性ストレス後の報酬関連脳構造におけるΔFosBの誘導 J.Neurosci。 2004 24(47)10594-10602
- Sim1遺伝子量はマウスの食物脂肪増加に対する恒常性摂食反応を調節する 午前 J.Physiol。 エンドクリノール。 メタブ 2004 287(1)E105 - E113
- 静水圧に応答したヒト視神経乳頭星状細胞における遺伝子発現のDNAマイクロアレイ解析 フィジオル。 ゲノミクス2004 17(2)157-169
- スーパーオキシドは心筋梗塞誘発性心不全の中枢神経系活性化および交感神経興奮に関与する サークル 結果 2004 94(3)402-409
- 反復ドーパミン作動性刺激への神経適応におけるアデノシンA2A受容体:パーキンソン病におけるジスキネジアの治療への影響 神経学2003 61(90116)S74-81
- カエル、Rana esculenta、精巣におけるFos関連蛋白質の細胞質対核局在:性腺刺激ホルモン放出ホルモンアゴニストのin vivoおよびin vitro直接作用 Biol。 再商品化します。 2003 68(3)954-960
- 思春期前後のマウスはコカインとアンフェタミンに反応して増強されたDelta FosBアップレギュレーションを示す J.Neurosci。 2002 22(21)9155-9159
- Delta FosBがホイールの回転を制御します J.Neurosci。 2002 22(18)8133-8138
- 側坐核の殻におけるCREB活性は感情的刺激に対する行動反応のゲーティングを制御する 手順 Natl。 アカド。 サイ。 アメリカ2002 99(17)11435-11440
- 心理ゲノム学:依存症を理解するための機会 J.Neurosci。 2001 21(21)8324-8327