Lenke til sammendrag – J Adolesc. 2019 9. feb.;72:10-13. doi: 10.1016/j.adolescence.2019.01.006.
Abstrakt
INTRODUKSJON: Fokus i denne korte litteraturvurderingen er å undersøke om det er et forhold mellom de unges anatomiske og fysiologiske paradigmene til ungdomshjernen og økt følsomhet overfor seksuelt eksplisitt materiale.
METODER: EBSCOs forskningsdatabaserte ble søkt ved hjelp av følgende nøkkelord: ungdomsår, ungdomshjerneutvikling, neuroplasticitet, seksuelt eksplisitt materiale, seksualisering og pornografi.
RESULTATER: Litteraturen fremhevet flere komponenter av ungdomshjernen som er forskjellig fra den modne hjernen. Disse inkluderer: en umoden prefrontal cortex og over-responsive limbic og striatal kretser, økt periode for neuroplasticitet, overaktivt dopamin-system, en uttalt HPA-akse, forsterkede nivåer av testosteron og den unike effekten av steroidhormoner. Den fysiologiske responsen på seksuelt eksplisitt materiale er avgrenset. Overlappingen av viktige områder knyttet til den unike ungdomshjerneutviklingen og seksuelt eksplisitt materiale er bemerkelsesverdig. En sammendrag av arbeidsmodell som sammenligner responsen fra den voksne og ungdomshjernen til den samme seksuelt eksplisitte stimulansen, er skissert.
KONKLUSJONER: Litteraturen antyder at den unge hjernen faktisk kan være mer følsom overfor seksuelt eksplisitt materiale, men på grunn av mangel på empiriske studier kan dette spørsmålet ikke besvares definitivt. Forslag til fremtidig forskning gis for å videreføre arbeidet i dette aktuelle feltet i dag.
Nøkkelord: ungdom Ungdomshjerneutvikling; neuroplasticity; Pornografi; seksual; Seksuelt eksplisitt materiale
PMID: 30754014
DOI: 10.1016/j.adolescence.2019.01.006
Unike paradigmer av ungdomshjerne
Fokuset for denne korte litteraturgjennomgangen er å utforske om det er en sammenheng mellom de unike anatomiske og fysiologiske paradigmene til ungdomshjernen og økt følsomhet for seksuelt eksplisitt materiale. EBSCOs forskningsdatabaser ble søkt ved hjelp av følgende nøkkelord: ungdomsår, ungdoms hjerneutvikling, nevroplastisitet, seksuelt eksplisitt materiale, seksualisering, pornografi. Ungdomsår er perioden mellom barndom og voksen alder omfattet av endringer i fysisk, psykologisk og sosial utvikling (Ernst, Pine, & Hardin, 2006).
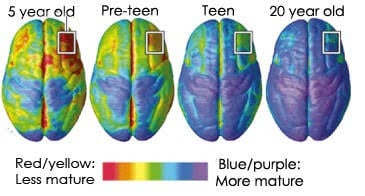
De unike paradigmene til ungdomshjernen inkluderer følgende: 1) En umoden prefrontal cortex og overresponsiv limbisk og striatal krets (Dumontheil, 2016; Somerville & Jones, 2010; Somerville, Hare, & Casey, 2011; Van Leijenhorst et al. , 2010; Vigil et al., 2011); 2) En økt periode for nevroplastisitet (McCormick & Mathews, 2007; Schulz & Sisk, 2006; Sisk & Zehr, 2005; Vigil et al., 2011); 3) Overaktivt dopaminsystem (Andersen, Rutstein, Benzo, Hostetter, & Teicher, 1997; Ernst et al., 2005; Luciana, Wahlstrom, & White, 2010; Somerville & Jones, 2010; Wahlstrom, White, & Luciana, 2010) ; 4) En utpreget HPA-akse (Dahl & Gunnar, 2009; McCormick & Mathews, 2007; Romeo, Lee, Chhua, McPherson, & McEwan, 2004; Walker, Sabuwalla, & Huot, 2004); 5) Forhøyede nivåer av testosteron (Dorn et al., 2003; Vogel, 2008; Mayo Clinic / Mayo Medical Laboratories, 2017); og 6) Den unike effekten av steroidhormoner (kortisol og testosteron) på hjernens utvikling under det ungdomsårlige organisasjonsvinduet (Brown & Spencer, 2013; Peper, Hulshoff Pol, Crone, Van Honk, 2011; Sisk & Zehr, 2005; Vigil et al., 2011).
Blakemore og kollegaer har ledet feltet i ungdomshjerneutvikling og har oppfattet at tenårene bør betraktes som en følsom periode på grunn av den dramatiske hjernereorganisasjonen som foregår (Blakemore, 2012). Hjernens områder som gjennomgår mest endring i ungdomsårene, inkluderer intern kontroll, multi-tasking og planlegging (Blakemore, 2012).
Blakemore og Robbins (2012) koblet ungdom til risikabel beslutningstaking og tilskrev denne karakteristikken til dissosiasjonen mellom den relativt langsomme, lineære utviklingen av impulskontroll og responsinhibering i ungdomsårene i forhold til den ikke-lineære utviklingen av belønningssystemet, som ofte er hyper-responsiv overfor belønninger i ungdomsårene.
Seksuelt eksplisitt materiale
Seksuelt eksplisitt materiale aktiverer amygdala av det limbiske systemet (Ferretti et al., 2005; Karama et al., 2002; Redoute et al., 2000; Walter et al., 2008). Aktivering av amygdala initierer samtidig: 1). Hypothalamus aktiverer nevroner i hjernestammen og ryggmargen som initierer den sympatiske delingen av det autonome nervesystemet som resulterer i systemisk frigjøring av epinefrin og norepinefrin. 2), stimulerer hypothalamus hypofysen, noe som resulterer i frigjøring av kortisol via hypotalamus-hypofysisk adrenal (HPA) akse og testosteronfrigivelse via hypotalamus-hypofysen-gonadal (HPG) akse (Viau, 2002); 3) kjernen accumbens aktiveres via dopamin. For en omfattende gjennomgang av amygdalaen og dens innervasjoner og regulering av somatiske prosesser, se Mirolli, Mannella og Baldassarre (2010). Funksjonen til prefrontal cortex er redusert, og funksjonen til basalganglia øker på grunn av frigjøring av nevrotransmittere (Arnsten, 2009, Hanson et al., 2012; Radley, 2005).
Både sjelden og hyppig bruk av pornografiske nettsteder var signifikant assosiert med sosial feiljustering blant greske ungdommer (Tsitsika et al., 2009). Bruk av pornografi bidro til å forsinke diskontering, eller individets tendens til å redusere fremtidige resultater til fordel for umiddelbare belønninger (Negash, Sheppard, Lambert, & Fincham, 2016). Negash og kollegaer brukte et utvalg som hadde en gjennomsnittsalder på 19 og 20, som forfatteren fremhevet var fortsatt biologisk ansett som ungdom. De gjentok at prøvene ikke rapporterte at de var vanedannende eller tvangsmessige brukere, men endringer i beslutningsprosesser ble fremdeles vist.
Bruk av pornografi er knyttet til stimulus og nevroplastisitet i det mesolimbiske dopaminerge belønningssystemet (Hilton, 2013). MR-skanninger fant en signifikant negativ sammenheng mellom rapporterte pornografitimer per uke og gråstoffvolum i riktig caudat og funksjonell forbindelse med den dorsolaterale prefrontale cortex (Kuhn & Gallinat, 2014). Pornografi kan være årsaken til denne nevroplastisiteten, men en forutsetning som gjør pornografiforbruk mer givende, kunne ikke utelukkes.
Sammendrag av arbeidsmodell
Vi foreslår en sammendrag av arbeidsmodell, med tanke på de unike paradigmene til ungdomshjernen og egenskapene til seksuelt eksplisitt materiale. Overlappingen av viktige områder knyttet til den unike ungdomshjernen og seksuelt eksplisitt materiale er bemerkelsesverdig.
Ved eksponering for seksuelt eksplisitt materiale ville stimuleringen av amygdala og HPA-aksen bli forbedret hos ungdom, sammenlignet med den voksne. Dette vil føre til en mer uttalt begrensning av prefrontal cortex og forbedret aktivering av basalganglier hos ungdommen. Denne tilstanden vil derfor kompromittere den utøvende funksjonen, som inkluderer inhibering og selvkontroll, og forbedrer impulsiviteten. Fordi ungdommens hjerne fremdeles utvikler seg, er den mer gunstig for nevroplastisitet. Den prefrontale cortexen går «off-line», for å si det sånn, driver den subtile kablingen som favoriserer utvikling av subkortikal. Hvis ubalansen i nevroplastisitet fortsetter over tid, kan dette resultere i en relativt svekket kortikal krets til fordel for en mer dominerende subkortikal krets, som kan disponere den unge for fortsatt selvtilfredsstillelse og impulsivitet. Den ungdoms kjernen accumbens, eller hjernens glede, ville ha en overdrevet stimulering sammenlignet med den voksne. De økte nivåene av dopamin vil oversette til utvidede følelser assosiert med dopamin, som glede og begjær (Berridge, 2006; Volkow, 2006).
På grunn av pubertets økning i testosteron, vil nivået også forsterkes i forhold til den voksne. Denne økningen i testosteron kan føre til høyere tendenser til aggresjon (Banks & Dabbs, 1996; Goetz et al., 2014; Nelson, Leibenluft, McClure, & Pine, 2005; Schulz & Sisk, 2006) og seksuell forventning (Amstislavskaya & Popova, 2004; Bonilla – Jaime, Vazquez-Palacios, Arteaga-Silva, & Retana-Marquez, 2006; Exton et al., 1999; Redoute et al., 2000; Stoleru et al., 1999;).
På grunn av det organisatoriske utviklingsvinduet i ungdomsårene, vil kortisol og testosteron ha en unik innvirkning på hjerneorganisasjonen eller den iboende levedyktigheten til forskjellige nevrale kretser. Denne effekten vil ikke bli funnet hos den voksne fordi dette spesifikke organisasjonsvinduet har lukket seg. Kronisk eksponering for kortisol har potensial i løpet av ungdomsorganisasjonsperioden til å drive nevroplastisitet som resulterer i kompromittert kognitiv funksjon og spenst, selv gjennom voksen alder (McEwen, 2004; Tsoory & Richter-Levin, 2006; Tsoory, 2008; McCormick & Mathews, 2007; 2010). Robustheten til amygdala etter puberteten, i det minste delvis, avhenger av størrelsen på testosteroneksponering under det kritiske utviklingsvinduet for ungdommer (De Lorme, Schulz, Salas-Ramirez, & Sisk, 2012; De Lorme & Sisk, 2013; Neufang et al., 2009; Sarkey, Azcoitia, Garcia-Segura, Garcia-Ovejero og DonCarlos, 2008). En robust amygdala er knyttet til forhøyede nivåer av følelsesmessighet og kompromittert selvregulering (Amaral, 2003; Lorberbaum et al., 2004; De Lorme & Sisk, 2013).
Diskusjon og fremtidig retning
Denne studien forsøkte å begynne den faglige samtalen: Kan ungdommer være mer følsomme overfor seksuelt eksplisitt materiale på grunn av de unike anatomiske og fysiologiske paradigmene til ungdomshjernen? Den nåværende litteraturen antyder at den unge hjernen faktisk kan være mer følsom overfor seksuelt eksplisitt materiale, men på grunn av mangel på empiriske studier kan dette spørsmålet ikke besvares definitivt. Utfordringen med å arbeide gjennom etiske hensyn til kontrollerte studier er også en betydelig, men forståelig barriere mot vitenskapelig fremgang på dette feltet.
Som en start anbefaler vi å gjennomføre populasjonsstudier ved hjelp av selvvurderingsundersøkelser som spørre om atferdsmessige tendenser før første eksponering for seksuelt eksplisitt materiale, og etter ulike eksponeringsgrader. Undersøkelser kan også gis til foreldrene for å finne ut om foreldre og barns forhold er en viktig faktor mot barns helse selv-effektivitet (og skolastisk ytelse).
En annen forskningsavdeling å vurdere er rollen som teknologi som en gateway for ungdom å bli utsatt for seksuelt eksplisitt materiale. Siden faktisk bruk av sosiale medier kan spores og sammenlignes med oppfattet bruk, vil spørreundersøkelser som ber deltakerne om å selvvurdere deres teknologiforbruk og eksponering for seksuelt eksplisitt materiale, være en rettferdig fremadrettet studie for å gjennomføre.
Til slutt kan et viktig bidrag til dette feltet være en longitudinell studie som innebærer å følge en gruppe barn gjennom ungdomsår og i voksen alder sammen med dokumentert medisinsk historie og oppkjøp av anatomiske, fysiologiske og psykologiske data fra regelmessig planlagt strukturell og funksjonell MR, og / eller PET-bildebehandling.
Å designe forsiktige, etiske studier for å undersøke effekten av seksuelt eksplisitt materialeksponering på ungdomshjernen er et nødvendig skritt mot å forstå variasjonen av voksenopplevelser med seksuelt eksplisitt materiale.
Referanser
- Amaral, DG (2003). Amygdala, sosial oppførsel og fareoppdagelse. Annaler fra New York Academy of Sciences, 1000, 337-347. https://doi.org/10.1196/
annals.1280.015. - Amstislavskaya, TG, & Popova, NK (2004). Kvinneindusert seksuell opphisselse hos hannmus og rotter: Atferdsmessig og testosteronrespons. Hormoner og atferd, 46,
544-550. - Andersen, SL, Rutstein, M., Benzo, JM, Hostetter, JC, & Teicher, MH (1997). Kjønnsforskjeller i overproduksjon og eliminering av dopaminreseptorer. NeuroReport,
8, 1495–1498. https://doi.org/10.1097/00001756-199704140-00034. - Arnsten, AFT (2009). Stress signalveier som svekker prefrontal cortex struktur og funksjon. Naturanmeldelser Neurovitenskap, 10 (6), 410-422. https://doi.org/
10.1038 / nrn2648. - Banks, T., & Dabbs, JM, Jr. (1996). Spytt testosteron og kortisol i en kriminell og voldelig urban subkultur. The Journal of Social Psychology, 136 (1), 49–56.
https://doi.org/10.1080/00224545.1996.9923028. - Berridge, KC (2006). Debatten om dopamins rolle i belønning: Saken for insentiv oppmerksomhet. Psykofarmakologi, 191, 391–431. https://doi.org/10.1007/
s00213-006-0578-x. - Blakemore, S. (2012). Utvikling av den sosiale hjernen i ungdomsårene. Journal of the Royal Society of Medicine, 105, 111-116. https://doi.org/10.1258/jrsm.2011.
110221. - Blakemore, S., & Robbins, TW (2012). Beslutningstaking i ungdomshjernen. Nature Neuroscience, 15 (9), 1184–1191. https://doi.org/10.1038/nn.3177.
- Bonilla-Jaime, H., Vazquez-Palacios, G., Arteaga-Silva, M., & Retana-Marquez, S. (2006). Hormonelle svar på forskjellige seksuelt relaterte tilstander hos hannrotter.
Hormoner og adferd, 49, 376-382. - Brown, GR, & Spencer, KA (2013). Steroidhormoner, stress og ungdomshjernen: Et sammenlignende perspektiv. Nevrovitenskap, 249, 115–128. https://doi.org/10.
1016 / j.neuroscience.2012.12.016. - Dahl, RE, & Gunnar, MR (2009). Økt stressrespons og emosjonell reaktivitet under modenhet i puberteten: Implikasjoner for psykopatologi.
Utvikling og psykopatologi, 21, 1-6. https://doi.org/10.1017/S0954579409000017. - De Lorme, KC, Schulz, KM, Salas-Ramirez, KY, & Sisk, CL (2012). Pubertalt testosteron organiserer regionalt volum og neuronal nummer i medialet
amygdala av voksne mannlige syriske hamstere. Brain Research, 1460, 33-40. https://doi.org/10.1016/j.brainres.2012.04.035. - De Lorme, KC, & Sisk, CL (2013). Pubertalt testosteron programmerer konteksttilpasset agonistisk oppførsel og tilhørende nevrale aktiveringsmønstre hos syrisk mann
hamstere. Psykologi og atferd, 112–113, 1–7. https://doi.org/10.1016/j.physbeh.2013.02.003. - Dorn, LD, Dahl, RE, Williamson, DE, Birmaher, B., Axelson, D., Perel, J., et al. (2003). Utviklingsmarkører i ungdomsår: Implikasjoner for studier av pubertal
prosesser. Journal of Youth and Adolescence, 32 (5), 315-324. - Dumontheil, I. (2016). Ungdomshjerneutvikling. Nåværende mening i Behavioral Sciences, 10, 39-44. https://doi.org/10.1016/j.cobeha.2016.04.012.
- Ernst, M., Nelson, EE, Jazbec, S., McClure, EB, Monk, CS, Leibenluft, E., et al. (2005). Amygdala og kjernen accumbens i svar på kvittering og utelatelse av
gevinster hos voksne og ungdom. NeuroImage, 25, 1279-1291. https://doi.org/10.1016/j.neuroimage.2004.12.038. - Ernst, M., Pine, DS, & Hardin, M. (2006). Triadisk modell av nevrobiologien til motivert oppførsel i ungdomsårene. Psykologisk medisin, 36 (3), 299–312.
- Exton, MS, Bindert, A., Kruger, T., Scheller, F., Hartmann, U., & Schedlowski, M. (1999). Kardiovaskulære og endokrine endringer etter onani-indusert
orgasme hos kvinner. Psykosomatisk medisin, 61, 280-289. - Ferretti, A., Caulo, M., Del Gratta, C., Di Matteo, R., Merla, A., Montorsi, F., et al. (2005). Dynamikk av mannlig seksuell opphisselse: Distinkte komponenter i hjerneaktivering
avslørt av fMRI. NeuroImage, 26, 1086-1096. https://doi.org/10.1016/j.neuromiage.2005.03.025. - Goetz, SMM, Tang, L., Thomason, ME, Diamond, MP, Hariri, AR, & Carre, JM (2014). Testosteron øker raskt nevralreaktivitet mot trussel hos sunne
menn: Et nytt to-trinns farmakologisk utfordringsparadigm. Biologisk psykiatri, 76, 324-331. - Hanson, JL, Chung, MK, Avants, BB, Rudolph, KD, Shirtcliff, EA, Gee, JC, et al. (2012). Strukturelle variasjoner i prefrontal cortex formidle forholdet
mellom tidlig barndomsstress og romlig arbeidsminne. Journal of Neuroscience, 32 (23), 7917-7925. https://doi.org/10.1523/jneurosci.0307-12.2012. - Hilton, DL (2013). Pornografiavhengighet - en overnaturlig stimulans betraktet i sammenheng med nevroplastisitet. Sosioaffektiv nevrovitenskap og psykologi, 3, 20767.
https://doi.org/10.3402/snp.v3i0.20767. - Karama, S., Lecours, AR, Leroux, J., Bourgouin, P., Beaudoin, G., Joubert, S., et al. (2002). Områder med hjerneaktivering hos menn og kvinner under visning av erotisk
filmutdrag. Human Brain Mapping, 16, 1-13. https://doi.org/10.1002/hbm.10014. - Kuhn, S., og Gallinat, J. (2014). Hjernestruktur og funksjonell tilkobling assosiert med pornografiforbruk. JAMA Psykiatri. https://doi.org/10.1001/
jamapsychiatry.2014.93. - Lorberbaum, JP, Kose, S., Johnson, MR, Arana, GW, Sullivan, LK, Hamner, MB, et al. (2004). Nevrale korrelater av taleforventende angst generelt
sosial fobi. NeuroReport, 15 (18), 2701-2705. - Luciana, M., Wahlstrom, D., & White, T. (2010). Neurobehavioral bevis for endringer i dopaminsystemaktivitet i ungdomsårene. Nevrovitenskap og bioadferd
Anmeldelser, 34 (5), 631-648. https://doi.org/10.1016/j.neubiorev.2009.12.007. - Mayo Clinic (2017). Mayo medisinske laboratorier. Test ID: TTFB testosteron, totalt, biotilgjengelig og gratis, serum. Hentet fra http://www.mayomedicallaboratories.com/
test-katalog / klinisk + + og tolknings / 83686. - McCormick, CM, & Mathews, IZ (2007). HPA-funksjon i ungdomsårene: Kjønnshormoners rolle i reguleringen og de varige konsekvensene av eksponering for stressfaktorer. Farmakologi, biokjemi og atferd, 86, 220–233. https://doi.org/10.1016/j.pbb.2006.07.012.
- McCormick, C., M., & Mathews, IZ (2010). Ungdomsutvikling, hypotalamus-hypofyse-binyrefunksjon, og programmering av voksenlæring og hukommelse.
- Progress in Neuro-psychopharmacology & Biological Psychiatry, 34, 756–765. https://doi.org/10.1016/j.pnpbp.2009.09.019.
- McEwen, B. (2004). Beskyttelse og skade fra akutt og kronisk stress. Annaler fra New York Academy of Sciences, 1032, 1-7. https://doi.org/10.1196/annals.
1314.001. - Mirolli, M., Mannella, F., og Baldassarre, G. (2010). Rollene til amygdalaen i den affektive reguleringen av kropp, hjerne og atferd. Connection Science, 22, 215–245.
https://doi.org/10.1080/09540091003682553. - Negash, S., Sheppard, N., Lambert, NM, & Fincham, FD (2016). Handler senere belønninger for nåværende glede: Pornografiforbruk og forsinkelsesdiskontering. De
Journal of Sex Research, 53 (6), 689-700. https://doi.org/10.1080/00224499.2015.1025123. - Nelson, EE, Leibenluft, E., McClure, EB, & Pine, DS (2005). Den sosiale omorienteringen av ungdomsårene: Et nevrovitenskapelig perspektiv på prosessen og dens forhold til
psykopatologi. Psykologisk medisin, 35, 163-174. https://doi.org/10.1017/S0033291704003915. - Neufang, S., Specht, K., Hausmann, M., Gunturkun, O., Herpertz-Dahlmann, B., Fink, GR, et al. (2009). Kjønnsforskjeller og effekten av steroidhormoner på
utvikler menneskelig hjerne. Cerebral cortex, 19, 464-473. https://doi.org/10.1093/cercor/bhn100. - Peper, JS, Hulshoff Pol, HE, Crone, EA, & Van Honk, J. (2011). Kjønnssteroider og hjernestruktur hos puberte gutter og jenter: En mini-gjennomgang av nevroavbildningsstudier.
Neuroscience, 191, 28-37. - Radley, J. (2005). Gjentatt stress og strukturell plastisitet i hjernen. Aging Research Anmeldelser, 4, 271-287. https://doi.org/10.1016/j.arr.2005.03.004.
- Redoute, J., Stoleru, S., Gregoire, M., Costes, N., Cinotti, L., Lavenne, F., et al. (2000). Brain behandling av visuelle seksuelle stimuli hos menn. Human Brain Mapping,
11, 162-177. - Romeo, RD, Lee, SJ, Chhua, N., McPherson, CR, og McEwen, BS (2004). Testosteron kan ikke aktivere en voksenlignende stressrespons hos prepubertale hannrotter.
Neuroendokrinologi, 79, 125-132. https://doi.org/10.1159/000077270. - Sarkey, S., Azcoitia, I., Garcia-Segura, LM, Garcia-Ovejero, D., & DonCarlos, LL (2008). Klassiske androgenreseptorer på ikke-klassiske steder i hjernen. Hormoner
og oppførsel, 53, 753-764. - Schulz, KM, & Sisk, CL (2006). Pubertetshormoner, ungdomshjernen og modning av sosial atferd: Leksjoner fra den syriske hamsteren. Molekylær og
Cellular Endocrinology, 254-256, 120-126. https://doi.org/10.1016/j.mce.2006.04.025. - Sisk, CL, og Zehr, JL (2005). Pubertale hormoner organiserer ungdommens hjerne og atferd. Frontiers in Neuroendocrinology, 26, 163–174. https://doi.org/10.1016/
j.yfrne.2005.10.003. - Somerville, LH, Hare, T., & Casey, BJ (2011). Frontostriatal modning forutsier kognitiv kontrollsvikt til appetittvekkende signaler hos ungdommer. Journal of Cognitive
Neuroscience, 23, 2123-2134. https://doi.org/10.1162/jocn.2010.21572. - Somerville, LH, & Jones, R. (2010). Tid for endring; atferdsmessige og nevrale korrelasjoner av ungdomsfølsomhet for appetittvekkende og aversive miljømerker. Hjerne
og kognisjon, 72 (1), 124-133. https://doi.org/10.1016/j.bandc.2009.07.003. - Stoleru, S., Gregoire, MC, Gerard, D., Decety, J., Lafarge, E., Cinotti, L., et al. (1999). Neuroanatomiske korrelater av visuelt fremkalt seksuell opphisselse hos menn.
Arkiv for seksuell adferd, 28, 1-21. - Tsitsika, A., Critselis, E., Kormas, G., Konstantoulaki, E., Constantopoulos, A., & Kafetzis, D. (2009). Ungdomspornografisk bruk av nettsteder: Et multivariat
regresjonsanalyse av prediktive bruksfaktorer og psykososiale implikasjoner. Cyberpsykologi og oppførsel, 12 (5), 545-550. https://doi.org/10.1089/cpb.
2008.0346. - Tsoory, M. (2008). Eksponering for stressorer under ungdomsforstyrrelser forstyrrer utviklingsrelaterte endringer i PSA-NCAM til NCAM ekspressjonsforhold: Potensiell relevans for
humør og angstlidelser. Neuropsykofarmakologi, 33, 378-393. https://doi.org/10.1038/sj.npp.1301397. - Tsoory, M., og Richter-Levin, G. (2006). Læring under stress hos den voksne rotten påvirkes differensielt av 'ungdoms' eller 'ungdoms' stress. International Journal of
Neuropsykofarmakologi, 9 (6), 713-728. https://doi.org/10.1017/S1461145705006255. - Van Leijenhorst, L., Zanolie, K., Van Meel, CS, Westenberg, PM, Rombouts, SARB, & Crone, EA (2010). Hva motiverer den unge? Hjerneregioner
formidler belønning følsomhet over ungdomsårene. Cerebral cortex, 20, 61-69. https://doi.org/10.1093/cercor/bhp078. - Viau, V. (2002). Funksjonell kryssprøve mellom hypothalamus-hypofysen-gonadale og binyrene. Journal of Neuroendocrinology, 14, 506-513.
- Vigil, P., Orellana, RF, Cortes, ME, Molina, CT, Switzer, BE, & Klaus, H. (2011). Endokrin modulering av ungdomshjernen: En gjennomgang. Journal of Pediatric og
Ungdomsgynekologi, 24 (6), 330-337. https://doi.org/10.1016/j.jpag.2011.01.061. - Vogel, G. (2008). Tid til å vokse opp. Vitenskap Nå, 2008 (863), 1.
- Volkow, N. (2006). Kokaininnretninger og dopamin i dorsalstriatum: Mekanisme av trang i kokainavhengighet. Journal of Neuroscience, 26 (24), 6583-6588.
https://doi.org/10.1523/JNEUROSCI.1544-06.2006. - Wahlstrom, D., White, T., & Luciana, M. (2010). Nevroadferdsmessig bevis for endringer i dopaminsystemaktivitet i ungdomsårene. Nevrovitenskap og bioadferd
Anmeldelser, 34, 631-648. https://doi.org/10.1016/j.neubiorev.2009.12.007. - Walker, EF, Sabuwalla, Z., og Huot, R. (2004). Pubertal nevromaturering, stressfølsomhet og psykopatologi. Utvikling og psykopatologi, 16, 807–824.
https://doi.org/10.1017/S0954579404040027. - Walter, M., Bermpohl, F., Mouras, H., Schiltz, K., Tempelmann, C., Rotte, M., et al. (2008). Distinguishing spesifikke seksuelle og generelle følelsesmessige effekter i fMRI-subkortisk og kortikal opphisselse under erotisk bildevisning. NeuroImage, 40, 1482-1494. https://doi.org/10.1016/j.neuroimage.2008.01.040.