COMMENTAIRES YBOP: L'effet Coolidge est à l'origine du pouvoir de la pornographie sur Internet. L'effet Coolidge est un phénomène observé chez les espèces de mammifères selon lequel les mâles (et dans une moindre mesure les femelles) manifestent un intérêt sexuel renouvelé s'ils sont présentés à de nouveaux partenaires sexuels réceptifs, même après avoir refusé le sexe à des partenaires sexuels antérieurs mais toujours disponibles. La nouveauté sexuelle l'emporte sur cette habituation avec une excitation renouvelée causée par une dopamine plus élevée. Un flux continu de nouveautés est ce qui rend le porno sur Internet si différent du porno du passé.
Article original, avec des graphiques
- Dennis F. Fiorino,
- Ariane Coury et
- Anthony G. Phillips
-
Le Journal of Neuroscience, 15 juin 1997, 17 (12): 4849-4855;
Abstract
L'effet Coolidge décrit la réinitiation du comportement sexuel chez un animal «assouvi sexuellement» en réponse à un nouveau partenaire réceptif. Étant donné le rôle du système dopaminergique mésolimbique (DA) dans l’initiation et le maintien d’un comportement motivé, la microdialyse a été utilisée pour surveiller la transmission de DA par le noyau accumbens (NAC) pendant la copulation, la satiété sexuelle et la réinitiation du comportement sexuel. En accord avec les rapports précédents, la présentation d'une œstreuse derrière un écran et la copulation étaient associées à une augmentation significative de l'efflux de NAC DA. Le retour des concentrations de DA du NAC aux valeurs de base a coïncidé avec une période de satiété sexuelle, bien que les concentrations des métabolites de l'AD, l'acide dihydroxyphénylacétique et l'acide homovanillique, soient restées élevées. La présentation d'une nouvelle femme réceptive derrière un écran a entraîné une légère augmentation de la NAC DA, augmentation qui a été augmentée de manière significative lors d'une nouvelle copulation avec la nouvelle femme. Les données actuelles suggèrent que les propriétés stimulantes d'une nouvelle femme réceptive peuvent servir à augmenter la transmission de la NDA DA chez un rat mâle rassasié sexuellement, ce qui peut être lié à la réinitiation du comportement sexuel.
Introduction
Un rat mâle ayant copulé à satiété peut être incité à s'accoupler de nouveau si la femelle initiale est remplacée par une nouvelle femelle réceptive. Ce phénomène, connu sous le nom d'effet Coolidge, a été observé chez plusieurs espèces de mammifères ( Wilson et al., 1963 ). Des facteurs généraux tels que la fatigue ou la dépression motrice ne suffisent pas à expliquer cet état apparent de satiété sexuelle, car les stimuli provenant d'une nouvelle femelle peuvent encore déclencher la copulation. La satiété sexuelle peut également être « inversée » pharmacologiquement, de façon significative, par l'administration de divers médicaments agissant sur différents systèmes de neurotransmetteurs. Ces substances comprennent la yohimbine, le 8-OH-DPAT ( Rodriguez-Manzo et Fernandez-Guasti, 1994 , 1995a ), la naloxone ( Pfaus et Gorzalka, 1987 ; Rodriguez-Manzo et Fernandez-Guasti, 1995a , b ) et l’apomorphine ( Mas et al., 1995c ). Bien que l’action périphérique de ces substances ne puisse être exclue (par exemple, des effets adrénergiques sur la fonction érectile), des effets sur les mécanismes centraux sous-jacents à la satiété sexuelle ont été proposés sur la base d’expériences de lésions noradrénergiques centrales sélectives ( Rodriguez-Manzo et Fernandez-Guasti, 1995a ) et d’expériences de microdialyse ayant permis de suivre le métabolisme dopaminergique dans l’aire préoptique médiane ( Mas et al., 1995a , b ).
Étant donné que des mécanismes centraux pourraient intervenir dans la réinitiation du comportement sexuel caractéristique de l'effet Coolidge, le système dopaminergique mésolimbique (DA), qui projette de l'aire tegmentale ventrale vers le noyau accumbens (NAc), est un candidat probable. La DA mésolimbique semble agir comme un modulateur primaire dans des processus intégratifs complexes impliquant l'évaluation de stimuli environnementaux, tels que les signaux émis par une femelle sexuellement réceptive, et l'organisation de comportements orientés vers un but, notamment la copulation ( Fibiger et Phillips, 1986 ; Blackburn et al., 1992 ; Phillips et al., 1992 ; LeMoal, 1995 ; Salamone, 1996 ).
Bien que les neurones dopaminergiques du mésencéphale répondent aux récompenses primaires et aux indices prédictifs de récompense, les stimuli environnementaux nouveaux ou imprévisibles induisent une activation neuronale plus robuste lors de séances d'entraînement répétées ( Fabre et al., 1983 ; Schultz, 1992 ; Mirenowicz et Schultz, 1994 ). De nombreuses données suggèrent un rôle facilitateur important de la dopamine mésolimbique dans l'initiation et le maintien du comportement sexuel chez le rat ( Pfaus et Everitt, 1995 ), et plusieurs études de microdialyse rapportent une augmentation de l'efflux de dopamine du noyau accumbens (NAc) durant les phases appétitive et consommatoire du comportement sexuel mâle ( Pfaus et al., 1990 ; Pleim et al., 1990 ; Damsma et al., 1992 ; Wenkstern et al., 1993 ; Fumero et al., 1994 ; Mas et al., 1995b ). Il existe cependant relativement peu de données sur les corrélats neurochimiques de la satiété sexuelle et de la reprise de l'activité sexuelle. L'application de la microdialyse in vivo pour suivre la neurotransmission dopaminergique mésolimbique durant l'effet Coolidge offre une opportunité unique d'étudier le rôle de la dopamine dans le noyau accumbens (NAc) lors de la copulation, de la satiété sexuelle et de la reprise de l'activité sexuelle.
Une expérience de microdialyse a été menée pour déterminer: (1) si l’apparition de la satiété sexuelle est accompagnée du retour des concentrations de DA extracellulaire dans le NAC à des valeurs inférieures ou égales à la précopulation, et (2) si le rétablissement du comportement copulatoire dans «mâle sexuellement rassasié» avec une nouvelle femme réceptive est en corrélation avec une augmentation de l'efflux de NAC DA.
Matériels et méthodes
Sujets. Des rats mâles Sprague Dawley, provenant du Centre de soins aux animaux (Université de la Colombie-Britannique), et des rates Long-Evans, provenant de Charles River Canada (Saint-Constant, Québec, Canada), ont été logés dans des cages grillagées (18 × 25 × 65 cm ; cinq par cage) dans des salles d’élevage séparées. La température des salles d’élevage était maintenue à environ 20 °C, selon un cycle lumière/obscurité inversé de 12 heures. Les rats avaient un accès illimité à la nourriture (Purina Rat Chow) et à l’eau.
Intervention chirurgicale et tests comportementaux avant la microdialyse cérébrale. Les rates ont subi une ovariectomie bilatérale sous anesthésie à l'halothane (Fluothane, Ayerst Laboratories) au moins 4 semaines avant les tests. La réceptivité sexuelle des femelles a été induite par des injections sous-cutanées de benzoate d'œstradiol (10 μg) et de progestérone (500 μg), respectivement 48 et 4 heures avant chaque séance de test. Le comportement sexuel des rats mâles a été évalué à deux reprises, à 4 jours d'intervalle, dans des cages en plexiglas (35 × 35 × 40 cm) à fond grillagé. Seuls les rats mâles ayant atteint un critère de performance, incluant l'intromission dans les 5 minutes suivant la présentation de la femelle et l'éjaculation dans les 15 minutes suivant la première intromission, lors des deux tests, ont reçu l'implantation des canules de guidage de la sonde de microdialyse.
Cinq rats mâles ont été anesthésiés par injection intrapéritonéale de chlorhydrate de kétamine (100 mg/kg) et de xylazine (10 mg/kg) avant une chirurgie stéréotaxique. Des canules de guidage pour sonde de microdialyse (calibre 19) ont été implantées bilatéralement au niveau du complexe arqué médian (coordonnées par rapport au bregma : antérieur, +1.7 mm ; médial, ± 1.1 mm ; ventral, −1.0 mm ; crâne plat) et fixées au crâne à l’aide de résine acrylique dentaire et de vis de bijoutier. L’implantation bilatérale des canules de guidage visait à optimiser les chances de réussite de l’expérience de microdialyse. Dans cette expérience, une seule canule par rat a été nécessaire. Les rats mâles ont été logés individuellement dans de grandes cages en plastique garnies de litière de rafles de maïs pour la durée restante de l’expérience. Une semaine après l’intervention, leur comportement sexuel a été évalué. Durant cette phase d’apprentissage, la chambre de test était équipée d’une cloison coulissante en plexiglas divisant l’espace en deux compartiments. Des rats mâles ont été introduits dans le grand compartiment et, 15 minutes plus tard, une femelle a été placée derrière un écran. Après une période préparatoire de 15 minutes, l'écran a été retiré et les rats ont pu s'accoupler pendant 30 minutes. Trois séances d'entraînement ont été réalisées, à raison d'une tous les 4 jours. Tous les rats ont atteint le critère de performance lors de chaque séance.
Expérience sur l'effet Coolidge. Des rats ont été implantés unilatéralement avec des sondes de microdialyse 12 à 18 heures avant l'expérience et placés dans le grand compartiment de la chambre de test avec libre accès à l'eau et à la nourriture. Le matin de l'expérience, des échantillons de microdialyse ont été prélevés toutes les 15 minutes. L'expérience comprenait les sept phases consécutives suivantes : (1) phase de base (au moins 60 minutes) ; (2) femelle 1 placée derrière l'écran (15 minutes) ; (3) copulation avec la femelle 1 jusqu'à ce qu'une période de 30 minutes sans monte soit observée ; (4) réintroduction de la femelle 1 derrière l'écran (15 minutes) ; (5) accès à la femelle 1 pendant 15 minutes en l'absence de monte (en cas de monte, cette phase était considérée comme la phase 3) ; (6) introduction de la femelle 2 derrière l'écran (15 minutes) ; (7) copulation avec la femelle 2 pendant 60 minutes.
Les comportements ont été filmés en faible luminosité à l'aide d'un système vidéo JVC et observés sur un moniteur vidéo situé à l'extérieur de la salle de test. Les mesures standardisées du comportement sexuel ont été enregistrées à l'aide d'un ordinateur et d'un logiciel approprié ( Holmes et al., 1987 ).
Après l'expérience de microdialyse, les animaux ont reçu une surdose d'hydrate de chloral et ont été perfusés par voie intracardique avec une solution saline et du formol (4%). Les cerveaux ont été tranchés et congelés, puis les coupes coronales ont été colorées au violet de crésyl pour déterminer l'emplacement des sondes de microdialyse. Seuls les rats avec des positions de sonde dans la NAC ont été utilisés pour des analyses comportementales et neurochimiques.
Microdialyse et détection électrochimique par HPLC. Les sondes de microdialyse étaient concentriques et comportaient une membrane semi-perméable à fibres creuses (2 mm de membrane exposée, 340 μm de diamètre extérieur, seuil de coupure de 65 000 Da, Filtral 12, Hospal) à leur extrémité distale. Elles étaient perfusées à un débit de 1.0 μl/min avec une solution de Ringer modifiée (tampon phosphate de sodium 0.01 M, pH 7.4, 1.3 mM CaCl₂ , 3.0 mM KCl, 1.0 mM MgCl₂ , 147 mM NaCl) à l'aide d'une seringue étanche aux gaz (Hamilton, Reno, NV) et d'une pompe à seringue (modèle 22, Harvard Apparatus, South Natick, MA). Un collier de guidage permettait de fixer la sonde de microdialyse à l'intérieur de la canule de guidage. Une bobine en acier, fixée à un pivot liquide (Instech 375s) monté sur le dessus de la chambre d'essai, a été utilisée pour protéger le tube de la sonde ( Fiorino et al., 1993 ).
Les analytes du microdialysat, incluant la dopamine (DA) et ses métabolites, l'acide dihydroxyphénylacétique (DOPAC) et l'acide homovanillique (HVA), ont été séparés par chromatographie en phase inverse (colonne Ultrasphere ; Beckman, Fullerton, CA, ODS 5 µm, 15 cm, 4.6 mm de diamètre interne) avec un tampon acétate de sodium 0.083 M, pH 3.5 (5 % de méthanol). Les concentrations des analytes ont été quantifiées par détection électrochimique (EC). L'appareil était composé d'une pompe Bio-Rad (Richmond, CA), d'un injecteur EC10W à deux positions Valco Instruments (Houston, TX), d'un détecteur EC Coulochem II (ESA, Bedford, MA) et d'un enregistreur graphique à deux canaux (Kipp and Zonen, Bohemia, NY). Les paramètres du détecteur électrochimique étaient les suivants : électrode 1, +450 mV ; électrode 2, −300 mV. et cellule de garde, −450 mV. Les récupérations typiques des sondes, réalisées in vitro et à température ambiante, étaient de 22 % pour la DA, 18 % pour le DOPAC et 18 % pour l'HVA.
RÉSULTATS
Comportement
Les mesures comportementales issues de l'expérience sur l'effet Coolidge sont présentées dans le tableau 1. Les latences de monte, d'intromission et d'éjaculation, ainsi que l'intervalle post-éjaculatoire après la première éjaculation, étaient similaires à celles observées lors de la séance d'entraînement précédente (données non présentées). Ceci suggère que la procédure de microdialyse n'a pas altéré le comportement sexuel normal. L'évolution vers la satiété sexuelle, mise en évidence par le nombre moyen d'éjaculations avant que le critère ne soit atteint (7.8 ± 0.5), la diminution progressive du nombre d'intromissions précédant chaque éjaculation et l'augmentation progressive de l'intervalle post-éjaculatoire (données non présentées), était similaire à celle rapportée dans des études antérieures ( Beach et Jordan, 1956 ; Fowler et Whalen, 1961 ; Fisher, 1962 ; Bermant et al., 1966 ; Rodriguez-Manzo et Fernandez-Guasti, 1994 ; Mas et al., 1995d ). Une variabilité individuelle a été observée concernant le nombre d'éjaculations obtenues avec la femelle 1, la durée des copulations avec cette dernière et le nombre de présentations nécessaires pour atteindre le critère de satiété (Tableau 1 , bas). Certains rats ont nécessité de nombreuses réintroductions de la femelle 1 jusqu'à la fin de la phase 5 ( n = 3). Le fait de placer la femelle 1 derrière l'écran et de retirer la cloison a probablement constitué un stimulus appétitif primaire induisant la copulation. Il convient également de noter qu'un critère de satiété de 30 minutes sans monte, bien qu'utilisé précédemment (Beach et Jordan, 1965 ; Mas et al., 1995b ), est arbitraire et ne garantit pas qu'un rat n'aurait pas monté la femelle si le temps avait été prolongé. De plus, les délais ou les procédures de retrait et de remplacement de la femelle n'ont pas permis d'obtenir systématiquement une nouvelle copulation avec la femelle 1 (par exemple, phases 4 et 5).
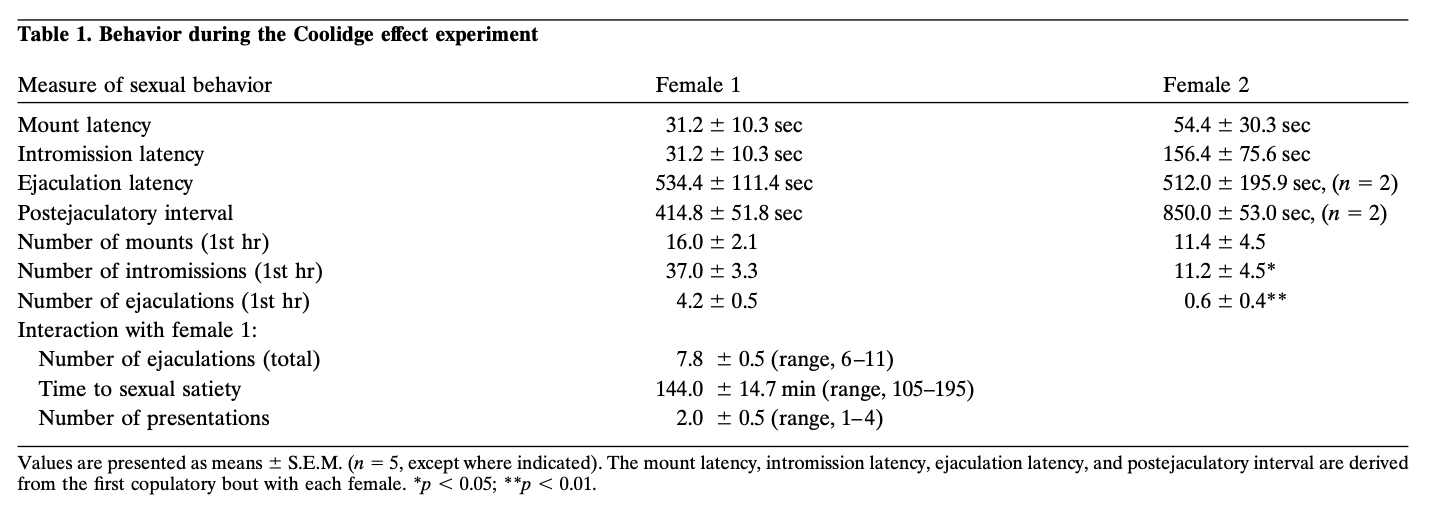
Comportement pendant l'expérience de l'effet Coolidge
Tous les rats ont présenté l'effet Coolidge. L'activité liée au placement de la femelle 2 derrière l'écran et, en particulier, au retrait de la cloison, a pu contribuer à ce résultat. Cependant, ces événements n'étaient pas suffisants à eux seuls pour relancer la copulation plus tôt dans l'expérience. Les comparaisons des comportements sexuels avec les femelles 1 et 2 ont été réalisées à l'aide de tests t avec correction de Bonferroni. Bien que les latences de monte et d'intromission en réponse à la femelle 2 ne diffèrent pas significativement de celles observées lors du premier accouplement avec la femelle 1, le comportement sexuel avec la femelle 2 était globalement moins intense, comme l'indiquent le nombre significativement inférieur d'éjaculations (moyenne : 0.6 vs 4.2 ; F = 49.86 ; p < 0.01) et d'intromissions (moyenne : 11.2 vs 37.0 ; F = 20.17 ; p < 0.05) durant la première heure. Le nombre de montes durant la première heure avec les femelles 1 et 2 n'était pas significativement différent.
Il est important de noter que les femmes utilisées au cours de la phase de satiété de l'expérience (1 femelle) ont toujours fait preuve d'un fort comportement proceptif (sauts et dard) et réceptif (lordose) pendant toute la durée de leur contact avec l'homme. .
neurochimie
Les concentrations basales nanomolaires de DA et de ses métabolites dans les microdialysats, exprimées en moyenne ± erreur standard à la moyenne (SEM), des trois premiers échantillons de référence étaient les suivantes : DA, 3.0 ± 0.7 ; DOPAC, 619.1 ± 77.7 ; et HVA, 234.2 ± 49.0 (non corrigées pour la récupération de la sonde ; n = 5). Ces valeurs représentaient 100 % des scores de référence.
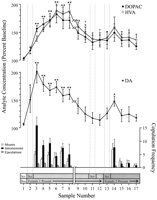
Les données comportementales, définies pour chaque phase de l'expérience et communes à tous les rats, ont été utilisées pour les analyses neurochimiques. Ces données comprenaient : (1) sept échantillons après la première introduction de la femelle 1, (2) quatre échantillons en l'absence de comportement copulatoire avec la femelle 1, et (3) cinq échantillons après la présentation de la femelle 2. La figure 1 illustre les variations de concentration de la dopamine (DA) (graphique linéaire, au milieu ) et de ses métabolites (graphique linéaire, en haut ) en fonction du comportement copulatoire (histogramme, en bas ) lors du test de l'effet Coolidge.
Voir la version plus grande:
Figue. 1.
Corrélats neurochimiques du noyau accumbens du comportement sexuel durant l'effet Coolidge. Les huit premiers échantillons représentent des données chronologiquement continues des phases 1 à 3. L'échantillon 1 correspond au quatrième et dernier échantillon de référence pré-copulation ( Bas ). L'échantillon 2 représente l'introduction de la femelle 1 derrière l'écran ( Scr ). Après 15 min, l'écran a été retiré et les rats ont été autorisés à copuler (échantillons 3 à 8). La discontinuité sur l' axe des abscisses correspond à l'exclusion des données de trois rats ayant copulé pendant des périodes prolongées avec la femelle initiale. Les neuf derniers échantillons sont également chronologiquement continus. Les échantillons 9 et 10 correspondent à la période de satiété de la phase 3 (soit 30 min sans monte). La femelle 1 a ensuite été réinsérée derrière l'écran (échantillon 11) et, 15 min plus tard, l'écran a été retiré (échantillon 12). Après 15 min sans copulation, la femelle 2 a été placée derrière l'écran (échantillon 13). Les échantillons 14 à 17 correspondent à la copulation avec la femelle 2. Le nombre de montes, d'intromissions ou d'éjaculations associées à chaque échantillon de microdialyse de 15 min est indiqué dans le graphique à barres inférieur . Les données neurochimiques sont exprimées en pourcentage des concentrations basales. Les variations d'efflux de NAC-DA ( carrés pleins ), de DOPAC ( cercles pleins ) et d'HVA ( cercles vides ) sont présentées sous forme de graphiques linéaires . Les comparaisons suivantes ont été effectuées : échantillon basal 1 versus échantillons 2 à 10 ; nouvel échantillon basal 10 versus échantillons 11 et 12 ; nouvel échantillon basal 12 versus échantillons 13 à 17 (* p < 0.05 ; ** p < 0.01). Des tests t indépendants ont été réalisés entre les valeurs basales (échantillons 1, 10 et 12). Pour les différences significatives par rapport à la première valeur basale (échantillon 1), † p < 0.05.
Des analyses de variance ( ANOVA) à un facteur avec mesures répétées ont été réalisées séparément sur les données neurochimiques associées à la femelle 1 (échantillons 1 à 12) et à la femelle 2 (échantillons 12 à 17). Des comparaisons a priori ont été effectuées à l'aide du test de comparaisons multiples de Dunn ( test t de Bonferroni ). Les trois principales comparaisons suivantes ont été réalisées : (1) valeur de référence initiale (échantillon 1) versus échantillons 2 à 10 (première exposition à la femelle 1), (2) deuxième valeur de référence (échantillon 10) versus échantillons 11 et 12 (réexposition à la femelle 1), et (3) troisième valeur de référence (échantillon 12) versus échantillons 13 à 17 (exposition à la femelle 2).
On a observé une variation globale significative de l'efflux de DA en réponse à la présence de la femelle 1 [ F (11,44) = 8.48 ; p < 0.001] et de la femelle 2 [ F (5,20) = 2.83 ; p < 0.05]. Une augmentation significative de l'efflux de DA a été constatée lorsque la femelle 1 était présente derrière l'écran (+44 %, p < 0.05 ; échantillon 2). Pendant la copulation, les concentrations de DA ont encore augmenté, atteignant une valeur maximale (+95 % ; p < 0.01) lors du premier accouplement (échantillon 3). La concentration de DA est restée élevée tout au long de la copulation et n'est revenue à son niveau de base que pendant les 30 minutes sans chevauchement (échantillons 9 et 10). Ni la réintroduction de la femelle 1 derrière l'écran (échantillon 11), ni la possibilité d'une interaction physique sans chevauchement (échantillon 12) n'ont entraîné d'élévation de la concentration de DA par rapport à la seconde valeur de base (échantillon 10). La présence de la femelle 2 derrière l'écran (échantillon 13) a entraîné une légère augmentation de l'efflux de DA (12 %) par rapport à la troisième valeur de référence (échantillon 12), sans toutefois atteindre le seuil de signification statistique. Une nouvelle copulation avec la femelle 2 a induit une augmentation significative (34 %) ( p < 0.05) de l'efflux de DA lors du premier échantillon de copulation (échantillon 14). Malgré une faible activité copulatoire persistante lors des trois échantillons suivants (échantillons 15 à 17), les concentrations de DA sont revenues à leurs valeurs de référence. Des tests t indépendants réalisés sur les échantillons de référence (échantillons 1, 10 et 12) ont démontré que ces valeurs n'étaient pas significativement différentes.
Chez les trois rats qui ont repris la copulation lorsque 1 femelle a été réintroduit, les concentrations de NAC DA ont augmenté lorsque 1 femelle était présente derrière l'écran (plage, 25 – 47%) et pendant la copulation (plage, 13 – 37%), par rapport à l'échantillon juste avant la réintroduction de la femelle. Ces augmentations, cependant, ne se sont produites que lorsque le comportement sexuel était vigoureux et avait conduit à l'éjaculation.
Des variations globales significatives des concentrations de DOPAC [ F (11,44) = 9.57 ; p < 0.001] et d'HVA [ F (11,44) = 12.47 ; p < 0,001] ont été observées en réponse à la femelle 1, mais pas à la femelle 2. Les concentrations de métabolites ont légèrement augmenté (+15 % dans les deux cas) lors de la présentation de la femelle 1 derrière l'écran (échantillon 2), mais cette augmentation n'était pas statistiquement significative. On a toutefois constaté des augmentations significatives des concentrations de DOPAC et d'HVA pendant la copulation (échantillons 3 à 8), atteignant des valeurs maximales (+80 % et +86 % respectivement ; p < 001) après 60 minutes (échantillon 6 dans les deux cas). Bien que les concentrations de métabolites aient diminué pendant la période d'inactivité sexuelle à la fin du contact avec la femelle 1 (échantillons 9 et 10), elles sont restées supérieures aux valeurs de base ( p < 0.05 dans les deux cas). La réintroduction de la femelle 1 derrière l'écran (échantillon 11), l'accès à la femelle 1 après le retrait de l'écran (échantillon 12) et l'introduction de la femelle 2 (échantillon 13) n'ont entraîné aucune modification des concentrations de métabolites. De légères augmentations, non significatives statistiquement, des concentrations de DOPAC et d'HVA (+23 % dans les deux cas) par rapport à la valeur de base (échantillon 12) ont été observées lors du premier accouplement avec la femelle 2 (échantillon 14). Cette augmentation a toutefois été transitoire et les concentrations sont revenues aux valeurs de base pour les trois échantillons suivants (15 à 17). Des tests t indépendants réalisés sur les échantillons de référence (échantillons 1, 10 et 12) ont indiqué que les deuxième et troisième valeurs de référence (échantillons 10 et 12, respectivement), bien que non différentes l'une de l'autre, restaient significativement élevées par rapport au premier échantillon de référence pour le DOPAC et l'HVA ( p < 0.05 dans les deux cas).
Histologie
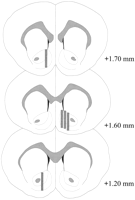
Les sondes de microdialyse étaient positionnées dans le complexe arqué nasal (CAM) (Fig. 2 ) entre +1.20 et +1.70 mm du bregma (crâne plat). Une variabilité a également été observée dans le plan médiolatéral ; les données reflètent un échantillonnage des sous-régions de la coquille et du noyau du CAM.
Voir la version plus grande:
Figue. 2.
Localisation des sondes de microdialyse dans le noyau accumbens de rats mâles utilisés dans l'expérience sur l'effet Coolidge. Les rectangles grisés correspondent à la surface membranaire exposée des sondes de microdialyse. Les coupes coronales sériées du cerveau ont été reproduites d'après Paxinos et Watson (1986).
DISCUSSION
Conformément aux études précédentes, les résultats actuels démontrent une transmission dopaminergique mésolimbique accrue, associée aux composantes appétitives et consommatoires du comportement sexuel du rat mâle, évaluée par microdialyse in vivo ( Mas et al., 1990 ; Pfaus et al., 1990 ; Pleim et al., 1990 ; Damsma et al., 1992 ; Wenkstern et al., 1993 ; Fumero et al., 1994 ; Mas et al., 1995a , b , d ). De plus, ces résultats fournissent un corrélat neurochimique de la satiété sexuelle et de la reprise de la copulation en réponse à une nouvelle femelle réceptive (effet Coolidge). Les données actuelles suggèrent que les propriétés de stimulation d'une nouvelle femelle réceptive pourraient augmenter la transmission dopaminergique dans le noyau accumbens chez un rat mâle sexuellement satiété, ce qui pourrait être lié à la reprise du comportement sexuel. Cela se manifeste d’abord par une légère augmentation de la DA du NAC lors de la présentation d’une nouvelle femelle derrière l’écran et se produit de manière plus convaincante par une augmentation plus prononcée lors d’une nouvelle copulation avec la femelle 2 (Fig. 1 ).
La présence de la première femelle réceptive derrière l'écran a induit une forte augmentation de la libération de dopamine (DA) par le noyau accumbens (NAc) (44 % par rapport à la valeur de base), d'une ampleur similaire à celle observée dans des expériences antérieures utilisant un protocole comparable (30 %, Pfaus et al., 1990 ; 35 %, Damsma et al., 1992 ). Ces études concordent également avec l'observation d'une augmentation supplémentaire de la libération de DA par le Nac pendant la copulation (à plus de 95 % au-dessus de la valeur de base dans la présente expérience). Bien que l'on puisse considérer les comportements de consommation comme étant associés à une libération accrue de DA par le Nac ( Wenkstern et al., 1993 ; Wilson et al., 1995 ), il est important d'examiner les termes « appétitif » et « consummatoire » dans le contexte du comportement sexuel. Alors que la phase durant laquelle la femelle est présente derrière l'écran est exclusivement appétitive ou préparatoire, le comportement observé pendant la phase de copulation ne peut être considéré comme purement consommatoire. Le terme « appétitif » pouvant désigner tous les comportements menant à la consommation d'un comportement motivé (copulation), le comportement principal du mâle durant la phase de consommation est parfaitement qualifié d'appétitif : il consacre la majeure partie de son temps et de son énergie à la poursuite de la femelle en vue de la copulation. À cet égard, nous pouvons corréler la transmission maximale de dopamine dans le noyau accumbens avec les composantes de consommation et d'appétit intense du comportement sexuel du rat mâle.
L'accès à la seconde femelle, nouvellement rencontrée, a entraîné une reprise de l'accouplement chez tous les sujets. Des études antérieures ont montré que la majorité des rats autorisés à s'accoupler jusqu'à satiété, selon un protocole comportemental similaire à celui utilisé dans la présente expérience, ne reprenaient pas l'accouplement 24 heures plus tard ( Beach et Jordan, 1956 ). Il est probable que la présence des nouvelles caractéristiques de la femelle 2, notamment des signaux olfactifs, visuels et auditifs, ait induit cette reprise de l'accouplement. Une question intéressante, qui reste à élucider, est de savoir par quel mécanisme un rat mâle distingue une femelle nouvellement rencontrée d'une femelle avec laquelle il s'est récemment accouplé. Ce mécanisme pourrait se situer au niveau du système olfactif principal. Il a été démontré que l'intégrité de ce système est essentielle à l'effet Coolidge chez le hamster ( Johnston et Rasmussen, 1984 ). Le système olfactif voméronasal accessoire, dans lequel un processus de mémoire phéromonale a été récemment décrit chez la souris ( Kaba et al., 1994 ), constitue également un candidat de choix. À cet égard, il est à noter que des augmentations de la transmission dopaminergique (DA) dans le noyau accumbens (NAc) ont été mesurées par voltampérométrie in vivo chez des rats mâles exposés à une litière ayant été en contact avec des rates en œstrus ( Louillot et al., 1991 ; Mitchell et Gratton, 1992 ). De plus, l’application de K⁺ directement sur la couche nerveuse voméronasale du bulbe olfactif accessoire, ainsi que sur le bulbe olfactif accessoire lui-même, a suffi à augmenter la transmission dopaminergique dans le NAc ( Mitchell et Gratton, 1992 ).
La première phase de copulation de 15 avec une femme 2 était associée à une augmentation significative du DA de la NAC. Contrairement à 1 féminin, l’interaction avec 2 féminin n’a pas entraîné d’augmentation de la NAC DA de même ampleur ni pendant les phases appétitive (12%) ni consommatrice (34%). Cependant, ces faibles augmentations de la NAC DA sont bien corrélées à la réduction du comportement sexuel affiché avec 2 féminin par rapport à 1 féminin. Les concentrations de métabolites sont restées élevées pendant la phase de satiété, ce qui a entraîné de nouvelles concentrations de base (échantillons 10 et 12) considérablement plus élevées que la valeur initiale (échantillon 1).
Le décalage temporel observé dans l'augmentation des concentrations de DOPAC et d'HVA pendant la copulation est cohérent avec leur formation en tant que métabolites du composé parent, la DA. Il a été suggéré que les concentrations de métabolites mesurées par microdialyse, au moins lors d'un comportement naturel non induit pharmacologiquement, constituent un indicateur utile de l'activité neuronale ( Damsma et al., 1992 ; Fumero et al., 1994 ). Le fait que les concentrations de métabolites soient restées élevées même pendant les périodes d'inactivité sexuelle dans cette expérience, alors que les concentrations de DA étaient revenues à leurs valeurs de base initiales, remet en question cette hypothèse.
L’élévation persistante des concentrations de métabolites DA observée dans cette expérience reflète le profil de la zone préoptique médiane (mPOA) des métabolites DA observés chez les rats le premier jour après leur copulation jusqu’à satiété (Mas et al., 1995a,b). Des élévations soutenues des concentrations de DOPAC et de HVA dans le NAC ou le mPAA ne sont pas toujours observées lorsque la période d'accouplement est d'une durée fixe, beaucoup plus courte que le temps requis pour atteindre la satiété. Par exemple, de nombreuses études ont montré que les concentrations de DOPAC étaient augmentées et restaient élevées pendant la copulation, mais elles sont revenues aux valeurs de base peu de temps après l’élimination de la femelle (Pfaus et al., 1990; Pleim et al., 1990; Damsma et al., 1992;Hull et al., 1993; Wenkstern et al., 1993; Hull et al., 1995). Dans l'étude de Mas et al. (1995b), les concentrations extracellulaires basales de DOPAC et de HVA dans le mPOA restaient élevées pendant plusieurs jours consécutifs 4, ce qui correspond à une période d’inactivité sexuelle. Le quatrième jour, juste avant que les animaux ne reprennent la copulation, les concentrations de base des métabolites étaient proches des valeurs de présatiation. Les auteurs ont comparé les modifications neurochimiques à celles observées après l'administration de bloqueurs des récepteurs DA (Zetterström et al., 1984; Imperato et DiChiara, 1985) et ont suggéré que l’état d’inactivité sexuelle pouvait être induit par la libération de prolactine, qui pourrait jouer le rôle de «neuroleptique endogène» (Mas et al., 1995a,b,d). Il est clair que l’administration de neuroleptiques est accompagnée d’une augmentation des concentrations de métabolites extracellulaires et d’un efflux de DA (Zetterström et al., 1984; Imperato et DiChiara, 1985). Malheureusement, Mas et al. (1995a,b) n'ont pas été en mesure de détecter les concentrations de DAA mPOA. Dans la présente étude, les concentrations de DA dans le NAC sont revenues aux valeurs de précopulation, alors que les concentrations de DOPAC et de HVA sont restées élevées. Ce schéma est incompatible avec le rôle d'un neuroleptique endogène agissant dans le CNA pour induire la satiété sexuelle.
Étant donné l'implication des neurones DA mésolimbiques dans le comportement motivé ( Fibiger et Phillips, 1986 ; Blackburn et al., 1992 ; Kalivas et al., 1993 ; LeMoal, 1995 ) et leur sensibilité aux nouveaux stimuli environnementaux ( Fabre et al., 1983 ; Schultz, 1992 ; Mirenowicz et Schultz, 1994 ), les augmentations observées des concentrations extracellulaires de DA NAC en réponse à la nouvelle femelle sont cohérentes avec l'hypothèse selon laquelle l'activité de ce système DA est importante pour la réinitiation du comportement sexuel. De plus, des rapports faisant état d'augmentations appétitives et consommatoires de la transmission de DA ( Hull et al., 1993 , 1995 ; Mas et al., 1995b ; Sato et al., 1995 ) et de l'activité neuronale ( Shimura et al., 1994 ) dans le mPOA des rats mâles pendant le comportement sexuel suggèrent que cette structure peut également contribuer à la copulation renouvelée caractéristique de l'effet Coolidge.
Conformément au rôle général du système dopaminergique mésolimbique dans les comportements motivés, il est bien établi que les concentrations extracellulaires de dopamine sont également élevées avant, pendant et immédiatement après la consommation d'un repas, avec un retour aux valeurs de base environ 30 minutes plus tard ( Wilson et al., 1995 ). On sait que la satiété induite par les aliments est influencée par leurs propriétés sensorielles. Les humains et les animaux rejettent les aliments qui les ont rassasiés et ingèrent d'autres aliments qu'ils n'avaient pas consommés ( Rolls, 1986 ). Ceci soulève la question de savoir si l'efflux de dopamine extracellulaire dans le noyau accumbens (NAc) serait augmenté sélectivement par la présentation d'un nouvel aliment, mais pas par un aliment récemment consommé à satiété, d'une manière analogue à celle observée dans la présente étude dans le contexte de la motivation sexuelle. Si elle est confirmée, cette relation générale entre les propriétés sensorielles des récompenses naturelles, la satiété et la transmission de la dopamine mésolimbique impliquerait un rôle crucial de ce système neuronal dans la régulation des processus motivationnels, dont la perturbation pourrait entraîner de graves troubles de l'alimentation et de la fonction sexuelle.
Références
- ↵
- Beach FA,
- Jordan L
(1956) Épuisement sexuel et récupération chez le rat mâle. QJ Exp Psychol 8: 121-133.
- ↵
- Bermant G,
- Lott DF,
- L Anderson
(1966) Caractéristiques temporelles de l'effet Coolidge dans le comportement copulateur du rat mâle. J Comp Physiol Psychiatry 65: 447-452.
- ↵
- Blackburn JR,
- Pfaus JG,
- Phillips AG
(1992) La dopamine fonctionne dans les comportements d'appétit et de défense. Prog Neurobiol 39: 247-279.
- ↵
- Damsma G,
- Pfaus JG,
- Wenkstern D,
- Phillips AG,
- Fibiger HC
(1992) Le comportement sexuel augmente la transmission de la dopamine dans le noyau accumbens et le striatum de rats mâles: comparaison avec la nouveauté et la locomotion. Behav Neurosci 106: 181-191.
- ↵
- Fabre M,
- Rolls ET,
- Ashton JP,
- Williams G
(1983) Activité des neurones dans la région tegmentale ventrale du singe en train de se comporter. Behav Brain Res 9: 213-235.
- ↵
- Fibiger HC,
- Phillips AG
(1986) Récompense, motivation, cognition: psychobiologie des systèmes dopaminergiques mésotelencéphaliques. in Manuel de physiologie: le système nerveux IV, éd. Bloom FE, Geiger SD (Société américaine de physiologie, Bethesda, MD), pp 647 – 675.
- ↵
- Fiorino DF,
- Coury AG,
- Fibiger HC,
- Phillips AG
(1993) La stimulation électrique des sites de récompense dans la région tegmentale ventrale augmente la transmission de la dopamine dans le noyau accumbens du rat. Behav Brain Res 55: 131-141.
- ↵
- Fisher A
(1962) Effets de la variation du stimulus sur la satiété sexuelle chez le rat mâle. J Comp Physiol Psychiatry 55: 614-620.
- ↵
- Fowler H,
- Whalen RE
(1961) Variation du stimulus et du comportement sexuel chez le rat mâle. J Comp Physiol Psychiatry 54: 68-71.
- ↵
- Fumero B,
- Fernendez-Vera JR,
- Gonzalez-Mora JL,
- Mas M
(1994) Changements dans le chiffre d'affaires des monoamines dans les zones du cerveau antérieur associées au comportement sexuel masculin: une étude par microdialyse. Brain Res 662: 233-239.
- ↵
- Holmes GM,
- Holmes DG,
- Sachs BD
(1987) Système de collecte de données basé sur IBM-PC pour enregistrer le comportement sexuel de rongeurs et pour enregistrer des événements généraux. Physiol Behav 44: 825-828.
- ↵
- Coque EM,
- Eaton RC,
- Moïse J,
- Lorrain DS
(1993) La copulation augmente l'activité de la dopamine dans la région préoptique médiale des rats mâles. Sci de vie 52: 935-940.
- ↵
- Coque EM,
- Jianfang D,
- Lorrain DS,
- Matuszewich L
(1995) Dopamine extracellulaire dans la région préoptique médiale: implications pour la motivation sexuelle et le contrôle hormonal de la copulation. J Neurosci 15: 7465-7471.
- ↵
- Imperato A,
- DiChiara G
(1985) Libération de dopamine et métabolisme chez des rats éveillés après des neuroleptiques systémiques étudiés par dialyse trans-striatale. J Neurosci 5: 297-306.
- ↵
- Johnston RE,
- Rasmussen K
(1984) Reconnaissance individuelle des hamsters femelles par les mâles: rôle des signaux chimiques et des systèmes olfactif et voméronasal. Physiol Behav 33: 95-104.
- ↵
- Kaba H,
- Hayashi Y,
- Higuchi T,
- Nakanishi S
(1994) Induction d'une mémoire olfactive par l'activation d'un récepteur métabotropique du glutamate. Science 265: 262-264.
- ↵
- Kalivas PW,
- Sorg BA,
- Crochets MS
(1993) Pharmacologie et circuits neuronaux de la sensibilisation aux psychostimulants. Comportement Pharmacol 4: 315-334.
- ↵
- LeMoal M
(1995) Neurones dopaminergiques mésocorticolimbiques. Rôles fonctionnels et réglementaires. en psychopharmacologie: la quatrième génération de progrès, eds Bloom FE, DJ Kupfer (Raven, New York), pp 283 – 294.
- ↵
- Louillot A,
- Gonzalez-Mora JL,
- Guadalupe T,
- Mas M
(1991) Les stimuli olfactifs liés au sexe induisent une augmentation sélective de la libération de dopamine dans le noyau accumbens de rats mâles. Brain Res 553: 313-317.
- ↵
- Mas M,
- Gonzalez-Mora JL,
- Louillot A,
- La semelle C,
- Guadalupe T
(1990) Augmentation de la libération de dopamine dans le noyau accumbens de rats mâles accouplés, comme en témoigne la voltampérométrie in vivo. Neurosci Lett 110: 303-308.
- ↵
- Mas M,
- Fumero B,
- Fernandez-Vera JR,
- Gonzalez-Mora JL
(1995a) Corrélats neurochimiques de l'épuisement sexuel et de la récupération, évalués par microdialyse in vivo. Brain Res 675: 13-19.
- ↵
- Mas M,
- Fumero B,
- Gonzalez-Mora JL
(1995b) Surveillance voltamétrique et par microdialyse de la libération de neurotransmetteur de monoamine dans le cerveau lors d’interactions sociosexuelles. Behav Brain Res 71: 69-79.
- ↵
- Mas M,
- Fumero B,
- Perez-Rodriguez I
(1995c) Induction du comportement d'accouplement par l'apomorphine chez des rats en colère. Eur J Pharmacol 280: 331-334.
- ↵
- Mas M,
- Fumero B,
- Perez-Rodriguez I,
- Gonzalez-Mora JL
(1995d) La neurochimie de la satiété sexuelle. Un modèle expérimental de désir inhibé. dans Pharmacologie de la fonction et des dysfonctions sexuelles, ed Bancroft, J (Raven, New York), pp 115 – 126.
- ↵
- Mirenowicz J,
- Schultz W
(1994) Importance de l'imprévisibilité pour les réponses de récompense dans les neurones dopaminergiques des primates. J Neurophysiol 72: 1024-1027.
- ↵
- Mitchell JB,
- Gratton A
(1992) Libération de dopamine mésolimbique induite par l’activation du système olfactif accessoire: étude chronoampérométrique à grande vitesse. Neurosci Lett 140: 81-84.
- ↵
- Paxinos G,
- Watson C
(1986) Le cerveau du rat en coordonnées stéréotaxiques (2nd ed). (Académique, San Diego).
- ↵
- Pfaus JG,
- Damsma G,
- Nomikos GG,
- Wenkstern D,
- Blaha CD,
- Phillips AG,
- Fibiger HC
(1990) Le comportement sexuel améliore la transmission centrale de la dopamine chez le rat mâle. Brain Res 530: 345-348.
- ↵
- Pfaus JG,
- Everitt BJ
(1995) La psychopharmacologie du comportement sexuel. en psychopharmacologie: la quatrième génération de progrès, eds Bloom FE, DJ Kupfer (Raven, New York), pp 743 – 758.
- ↵
- Pfaus JG,
- Gorzalka BB
(1987) Opioïdes et comportement sexuel. Neurosci Biobehav Rev 11: 1-34.
- ↵
- Phillips AG,
- Blaha CD,
- Pfaus JG,
- Blackburn JR
(1992) Corrélats neurobiologiques des états émotionnels positifs: dopamine, anticipation et récompense. dans Revue internationale d'études sur les émotions, Ed Strongman (Wiley, New York), pp 31 – 50.
- ↵
- Pleim ET,
- Le juge Matochik,
- Barfield RJ,
- Auerbach SB
(1990) Corrélation entre la libération de dopamine dans le noyau accumbens et le comportement sexuel masculin chez le rat. Brain Res 524: 160-163.
- ↵
- Rodriguez-Manzo G,
- Fernandez-Guasti A
(1994) Inversion de l'épuisement sexuel par des agents sérotoninergiques et noradrénergiques. Behav Brain Res 62: 127-134.
- ↵
- Rodriguez-Manzo G,
- Fernandez-Guasti A
(1995a) Participation du système noradrénergique central au rétablissement du comportement copulatoire de rats sexuellement épuisés par la yohimbine, la naloxone et 8-OH-DPAT. Brain Res Bull 38: 399-404.
- ↵
- Rodriguez-Manzo G,
- Fernandez-Guasti A
(1995b) Les antagonistes des opioïdes et le phénomène de satiation sexuelle. Psychopharmacol 122: 131-136.
- ↵
- Rolls BJ
(1986) Satiété sensorielle spécifique. Nutr Rev 44: 93-101.
- ↵
- Salamone JD
(1996) Neurochimie comportementale de la motivation: questions méthodologiques et conceptuelles dans les études sur l’activité dynamique du noyau accumbens dopamine. J Neurosci Méthodes 64: 137-149.
- ↵
- Sato Y,
- Wada H,
- Horita H,
- Suzuki N,
- Shibuya A,
- Adachi H,
- Kato R,
- Tsukamoto T,
- Kumamoto Y
(1995) Libération de dopamine dans la région pré-optique médiane lors du comportement copulatoire masculin chez le rat. Brain Res 692: 66-70.
- ↵
- Schultz W
(1992) Activité des neurones dopaminergiques chez le primate qui se comporte. Semin Neurosci 4: 129-138.
- ↵
- Shimura T,
- Yamamoto T,
- Shimokochi M
(1994) La zone préoptique médiale est impliquée à la fois dans l'éveil sexuel et la performance chez le rat mâle: réévaluation de l'activité des neurones chez des animaux en libre mouvement. Brain Res 640: 215-222.
- ↵
- Wenkstern D,
- Pfaus JG,
- Fibiger HC
(1993) La transmission de la dopamine augmente dans le noyau accumbens des rats mâles lors de leur première exposition à des rats femelles sexuellement réceptifs. Brain Res 618: 41-46.
- ↵
- Wilson C,
- Nomikos GG,
- Collu M,
- Fibiger HC
(1995) Corrélats dopaminergiques du comportement motivé: importance de la motivation. J Neurosci 15: 5169-5178.
- ↵
- Wilson JR,
- Kahn RE,
- Plage FA
(1963) Modification du comportement sexuel de rats mâles produite en modifiant le stimulus femelle. J Comp Physiol Psychiatry 56: 636-644.
- ↵
- Zetterström T,
- Sharp T,
- Ungerstedt U
(1984) Effet des médicaments neuroleptiques sur la libération et le métabolisme de la dopamine dans le striatisme chez le rat éveillé étudié par dialyse intracérébrale. Eur J Pharmacol 106: 27-37.
Articles citant cet article
-
Neuroplasticité Endogène Induite Par Les Opioïdes Des Neurones Dopaminergiques Dans La Zone Du Tegmental Ventral Influence Les Récompenses Naturelles Et Opiacées Journal of Neuroscience, 25 juin 2014, 34 (26): 8825-8836
-
Déséquilibre dans la sensibilité aux différents types de récompenses dans le jeu pathologique Cerveau, 1 August 2013, 136 (8): 2527-2538
-
Natural and Drug Rewards Act sur les mécanismes de plasticité neuronale courants avec {Delta} FosB en tant que médiateur clé Journal of Neuroscience, 20 février 2013, 33 (8): 3434-3442
-
Réponses neuronales dans la coquille du noyau accumbens au cours du comportement sexuel chez le rat Journal of Neuroscience, 1 février 2012, 32 (5): 1672-1686
-
Amour romantique: un système cérébral de mammifère pour le choix du partenaire Transactions philosophiques de la société royale B: sciences biologiques, 29, décembre 2006, 361 (1476): 2173-2186
-
Points chauds hédoniques dans le cerveau Le neuroscientifique, 1 décembre 2006, 12 (6): 500-511
-
Modulation Par Noyaux Amygdalar Centrales Et Basolatérales Des Corrélats Dopaminergiques De L'alimentation à La Satiété Dans Le Noyau De Accumbens Et Le Cortex Préfrontal Médial De Rat Journal of Neuroscience, 15 décembre 2002, 22 (24): 10958-10965
-
Fréquence Des Transitoires De Concentration De Dopamine Augmentation Des Striatum Dorsale Et Ventrale De Rats Mâles Pendant L'introduction De Conspécifiques Journal of Neuroscience, 1 décembre 2002, 22 (23): 10477-10486
-
Critique de livre: Dynamique de la dopamine extracellulaire dans les actions aiguës et chroniques de la cocaïne Le neuroscientifique, 1 August 2002, 8 (4): 315-322
-
Implication Différentielle Des Récepteurs NMDA, AMPA / Kainate Et Dopamine Dans Le Noyau Accumbens Noyau Dans L'acquisition Et La Performance Du Comportement D'approche De Pavlovian Journal of Neuroscience, 1 décembre 2001, 21 (23): 9471-9477
-
Contrôle du comportement de recherche de cocaïne par des stimuli associés à la drogue chez le rat: effets sur la récupération des niveaux de dopamine extracellulaire et à réponse opérante éteints dans l'amygdale et le noyau accumbens PNAS, 11, avril 2000, 97 (8): 4321-4326
-
Facilitation Du Comportement Sexuel Et Efflux Amélioré De La Dopamine Dans Le Noyau Accumbens De Rats Mâles Après Une Sensibilisation Comportementale Induite Par La D-Amphétamine Journal of Neuroscience, 1 janvier 1999, 19 (1): 456-463
-
NEUROSCIENCE: attirer l'attention du cerveau Science, 3 octobre 1997, 278 (5335): 35-37
-
Corrélats Dopaminergiques De La Satiété Sensitive-Spécifique Dans Le Cortex Préfrontal Médial Et Le Noyau Accumbens Du Rat Journal of Neuroscience, 1 octobre 1999, 19 (19): RC29