Desenvolvimento Rev. 2008; 28 (1) : 62–77. doi: 10.1016/j.dr.2007.08.003
Sumário
A adolescência é um período de desenvolvimento caracterizado por decisões e ações sub-ótimas que dão origem a um aumento da incidência de lesões e violência não intencionais, abuso de álcool e drogas, gravidez não intencional e doenças sexualmente transmissíveis. Explicações neurobiológicas e cognitivas tradicionais para o comportamento do adolescente falharam em explicar as mudanças não-lineares no comportamento observadas durante a adolescência, em relação à infância e à idade adulta. Esta revisão fornece uma conceituação biologicamente plausível dos mecanismos neurais subjacentes a essas mudanças não lineares no comportamento, como uma maior responsividade aos incentivos, enquanto o controle de impulsos ainda é relativamente imaturo durante esse período. Estudos recentes com imagens humanas e animais fornecem uma base biológica para essa visão, sugerindo um desenvolvimento diferencial dos sistemas de recompensa límbicos em relação aos sistemas de controle de cima para baixo durante a adolescência em relação à infância e à idade adulta. Esse padrão de desenvolvimento pode ser exacerbado naqueles adolescentes com uma predisposição para assumir riscos, aumentando o risco de resultados ruins.
De acordo com o Centro Nacional de Estatísticas de Saúde, ocorrem mais de 13,000 mortes de adolescentes nos Estados Unidos a cada ano. Aproximadamente 70% dessas mortes resultam de acidentes de trânsito, lesões não intencionais, homicídios e suicídios ( Eaton et al., 2006 ). Os resultados da Pesquisa Nacional de Comportamento de Risco entre Jovens (YRBS, na sigla em inglês) de 2005 mostram que os adolescentes se envolvem em comportamentos que aumentam a probabilidade de morte ou doença, como dirigir após ingerir bebidas alcoólicas ou sem cinto de segurança, portar armas, usar substâncias ilícitas e praticar sexo sem proteção, resultando em gravidez indesejada e DSTs, incluindo infecção pelo HIV ( Eaton et al., 2006 ). Essas estatísticas ressaltam a importância de compreender as escolhas e ações de risco dos adolescentes.
Diversas hipóteses cognitivas e neurobiológicas foram postuladas para explicar por que os adolescentes se envolvem em comportamentos de escolha subótimos. Em uma revisão recente da literatura sobre o desenvolvimento cerebral na adolescência, Yurgelun-Todd (2007) sugere que o desenvolvimento cognitivo ao longo da adolescência está associado a uma eficiência progressivamente maior das capacidades de controle cognitivo. Essa eficiência é descrita como dependente da maturação do córtex pré-frontal, evidenciada pelo aumento da atividade em regiões pré-frontais focais ( Rubia et al., 2000 ; Tamm, Menon e Reiss, 2002 ) e pela diminuição da atividade em regiões cerebrais irrelevantes ( Brown et al., 2005 ; Durston et al., 2006 ).
Esse padrão geral, de melhor controle cognitivo com a maturação do córtex pré-frontal, sugere um aumento linear no desenvolvimento desde a infância até a idade adulta. No entanto, escolhas e ações sub-ótimas observadas durante a adolescência representam uma mudança não-linear no comportamento que pode ser distinguida da infância e da idade adulta, como evidenciado pelo National Center for Health Statistics sobre comportamento e mortalidade de adolescentes. Se o controle cognitivo e um córtex pré-frontal imaturo foram a base para o comportamento de escolha abaixo do ideal, então as crianças devem parecer notavelmente semelhantes ou até piores que os adolescentes, dado seu córtex pré-frontal menos desenvolvido e suas habilidades cognitivas. Assim, a função pré-frontal imatura sozinha não pode explicar o comportamento do adolescente.
Uma conceitualização precisa das mudanças cognitivas e neurobiológicas durante a adolescência deve tratar a adolescência como um período de desenvolvimento de transição ( Spear, 2000 ), e não como um único instantâneo no tempo ( Casey, Tottenham, Liston & Durston, 2005 ). Em outras palavras, para compreender esse período de desenvolvimento, as transições para dentro e para fora da adolescência são necessárias para distinguir os atributos distintos dessa fase do desenvolvimento. Estabelecer trajetórias de desenvolvimento para os processos cognitivos e neurais é essencial para caracterizar essas transições e restringir as interpretações sobre as mudanças de comportamento durante esse período. Em um nível cognitivo ou comportamental, os adolescentes são caracterizados como impulsivos (ou seja, com falta de controle cognitivo) e propensos a correr riscos, sendo esses construtos usados como sinônimos e sem levar em consideração as distintas trajetórias de desenvolvimento de cada um. Em um nível neurobiológico, estudos de neuroimagem em humanos e em animais sugerem bases neurobiológicas e trajetórias de desenvolvimento distintas para os sistemas neurais que sustentam esses construtos separados de controle de impulsos e decisões arriscadas.
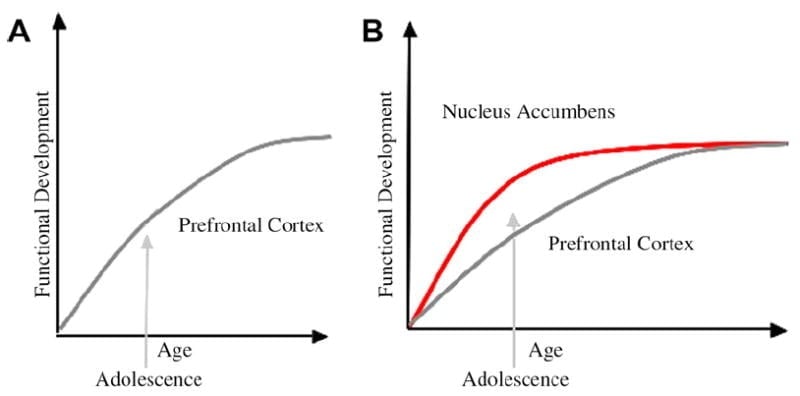
Desenvolvemos um modelo neurobiológico do desenvolvimento adolescente dentro dessa estrutura, baseado em modelos de roedores ( Laviola, Adriani, Terranova e Gerra, 1999 ; Spear, 2000 ) e em estudos recentes de neuroimagem da adolescência ( Ernst et al., 2005 ; Galvan, Hare, Voss, Glover e Casey, 2007 ; Galvan et al., 2006 ). A Figura 1 abaixo ilustra esse modelo. À esquerda, encontra-se a caracterização tradicional da adolescência como relacionada quase exclusivamente à imaturidade do córtex pré-frontal. À direita, está o nosso modelo neurobiológico proposto, que ilustra como as regiões límbicas subcorticais e as regiões de controle pré-frontal de cima para baixo devem ser consideradas em conjunto. A ilustração representa diferentes trajetórias de desenvolvimento para esses sistemas, com os sistemas límbicos se desenvolvendo mais cedo do que as regiões de controle pré-frontal. De acordo com este modelo, o indivíduo é mais influenciado por regiões límbicas funcionalmente maduras durante a adolescência (ou seja, desequilíbrio entre o controle límbico e o pré-frontal), em comparação com crianças, para as quais ambos os sistemas (límbico e pré-frontal) ainda estão em desenvolvimento; e em comparação com adultos, para os quais esses sistemas estão totalmente maduros. Essa perspectiva fornece uma base para mudanças não lineares no comportamento ao longo do desenvolvimento, devido à maturação precoce do sistema límbico em relação à região pré-frontal, menos madura e responsável pelo controle de cima para baixo. Com o desenvolvimento e a experiência, a conectividade funcional entre essas regiões fornece um mecanismo para o controle de cima para baixo dessas regiões ( Hare, Voss, Glover e Casey, 2007a ). Além disso, o modelo reconcilia a contradição entre as estatísticas de saúde sobre comportamentos de risco durante a adolescência e a perspicaz observação de Reyna e Farley (2006) de que os adolescentes são capazes de raciocinar e compreender os riscos dos comportamentos nos quais se envolvem. Segundo nosso modelo, em situações emocionalmente relevantes, o sistema límbico prevalecerá sobre os sistemas de controle, dada a sua maturidade em relação ao sistema de controle pré-frontal. Evidências de estudos comportamentais e de neuroimagem que apoiam esse modelo são fornecidas no contexto de ações em situações recompensadoras e emocionais ( Galvan et al., 2006 , 2007 ; Hare, Voss, Glover e Casey, 2007b ; Hare et al., 2007a ). Além disso, especulamos sobre por que o cérebro pode se desenvolver dessa maneira e por que alguns adolescentes podem estar em maior risco de tomar decisões subótimas, levando a resultados piores a longo prazo ( Galvan et al., 2007 ; Hare et al., 2007b ).
A explicação tradicional do comportamento do adolescente tem sido sugerida como sendo devido ao desenvolvimento prolongado do córtex pré-frontal (A). Nosso modelo leva em consideração o desenvolvimento do córtex pré-frontal juntamente com regiões límbicas subcorticais (por exemplo, nucleus accumbens) que foram implicadas em escolhas e ações de risco (B).
Desenvolvimento de comportamento direcionado por objetivos
Uma pedra angular do desenvolvimento cognitivo é a capacidade de suprimir pensamentos e ações inapropriados em favor de objetivos direcionados, especialmente na presença de incentivos convincentes (Casey, Galvan, & Hare, 2005; Casey et al., 2000b; Casey, Thomas, David-son, Kunz e Franzen, 2002a; Casey, Tottenham e Fossella, 2002b). Vários estudos clássicos de desenvolvimento mostraram que essa habilidade se desenvolve ao longo da infância e adolescência (Case, 1972; Flavell, Feach e Chinsky, 1966; Keating & Bobbitt, 1978; Pascual-Leone, 1970). Vários teóricos argumentaram que o desenvolvimento cognitivo é devido a aumentos na velocidade e eficiência de processamento e não devido a um aumento na capacidade mental (por exemplo, Bjorkland, 1985; Bjorkland, 1987; Case, 1985). Outros teóricos incluíram a construção de processos “inibitórios” em sua conta do desenvolvimento cognitivo (Harnishfeger & Bjorkland, 1993). De acordo com esse relato, a cognição imatura é caracterizada pela suscetibilidade à interferência de fontes concorrentes que devem ser suprimidas (por exemplo, Brainerd & Reyna, 1993; Casey, Thomas, Davidson, Kunz, & Franzen, 2002a; Dempster, 1993; Diamante, 1985; Munakata & Yerys, 2001). Assim, o comportamento direcionado por metas requer o controle de impulsos ou atraso de gratificação para a otimização dos resultados, e essa capacidade parece amadurecer na infância e adolescência.
O comportamento adolescente tem sido descrito como impulsivo e arriscado, quase como sinônimos; contudo, esses construtos se baseiam em diferentes processos cognitivos e neurais, o que sugere construções distintas com diferentes trajetórias de desenvolvimento. Especificamente, uma revisão da literatura sugere que a impulsividade diminui com a idade ao longo da infância e adolescência ( Casey et al., 2002a ; Casey, Galvan et al., 2005 ; Galvan et al., 2007 ) e está associada ao desenvolvimento prolongado do córtex pré-frontal ( Casey, Galvan et al., 2005 ), embora existam diferenças no grau em que um indivíduo é impulsivo ou não, independentemente da idade.
Em contraste com o controle impulsivo/cognitivo, a propensão ao risco parece aumentar durante a adolescência em relação à infância e à idade adulta, e está associada a sistemas subcorticais conhecidos por estarem envolvidos na avaliação de recompensas. Estudos de neuroimagem em humanos, que serão revisados, sugerem um aumento na ativação subcortical (por exemplo, no núcleo accumbens) ao se fazer escolhas arriscadas ( Kuhnen & Knutson, 2005 ; Matthews et al., 2004 ; Montague & Berns, 2002 ), que é exacerbado em adolescentes, em comparação com crianças e adultos ( Ernst et al., 2005 ; Galvan et al., 2006 ). Essas descobertas sugerem trajetórias diferentes para o comportamento baseado em recompensa ou incentivo, com desenvolvimento mais precoce desses sistemas em relação aos sistemas de controle, que apresentam um curso de desenvolvimento prolongado e linear, em termos de sobreposição de escolhas e ações inadequadas em favor de ações direcionadas a objetivos.
Evidências de estudos de neuroimagem do desenvolvimento do cérebro humano
Investigações recentes sobre o desenvolvimento cerebral na adolescência têm se baseado em avanços em metodologias de neuroimagem que podem ser facilmente utilizadas em populações humanas em desenvolvimento. Esses métodos utilizam técnicas de ressonância magnética (RM) (ver Figura 2 ) e incluem: RM estrutural, utilizada para medir o tamanho e a forma das estruturas; RM funcional, utilizada para medir padrões de atividade cerebral; e imagem por tensor de difusão (ITD), utilizada para indexar a conectividade dos tratos de fibras da substância branca. A evidência para o nosso modelo de desenvolvimento de competição entre regiões corticais e subcorticais é corroborada pela conectividade estrutural e funcional imatura, medida por ITD e RMD, respectivamente.

Estudos de ressonância magnética do desenvolvimento do cérebro humano
Diversos estudos utilizaram ressonância magnética estrutural para mapear o curso anatômico do desenvolvimento cerebral normal (ver revisão de Durston et al., 2001 ). Embora o tamanho total do cérebro atinja aproximadamente 90% do tamanho adulto aos seis anos de idade, os componentes de substância cinzenta e branca continuam a sofrer mudanças dinâmicas ao longo da adolescência. Dados de estudos longitudinais recentes de ressonância magnética indicam que o volume da substância cinzenta apresenta um padrão em forma de U invertido, com maior variação regional do que a substância branca ( Giedd, 2004 ; Gogtay et al., 2004 ; Sowell et al., 2003 ; Sowell, Thompson e Toga, 2004 ). Em geral, as regiões responsáveis por funções primárias, como os sistemas motor e sensorial, amadurecem mais cedo; as áreas de associação de ordem superior, que integram essas funções primárias, amadurecem mais tarde ( Gogtay et al., 2004 ; Sowell, Thompson e Toga, 2004 ). Por exemplo, estudos que utilizam medidas baseadas em ressonância magnética mostram que a perda de substância cinzenta cortical ocorre mais precocemente nas áreas sensório-motoras primárias e mais tardiamente nos córtices pré-frontal dorsolateral e temporal lateral ( Gogtay et al., 2004 ). Esse padrão é consistente com estudos post-mortem em primatas não humanos e humanos que demonstram que o córtex pré-frontal é uma das últimas regiões cerebrais a amadurecer ( Bourgeois, Goldman-Rakic e Rakic, 1994 ; Huttenlocher, 1979 ). Em contraste com a substância cinzenta, o volume da substância branca aumenta em um padrão aproximadamente linear, crescendo ao longo do desenvolvimento até a idade adulta ( Gogtay et al., 2004 ). Essas mudanças provavelmente refletem a mielinização contínua dos axônios pelos oligodendrócitos, aprimorando a condução e a comunicação neuronal.
Embora as regiões subcorticais tenham recebido menos atenção ao se examinarem as mudanças estruturais, algumas das maiores alterações cerebrais ao longo do desenvolvimento são observadas nessas regiões, particularmente nos gânglios da base ( Sowell et al., 1999 , ver Fig. 3 ) e especialmente em indivíduos do sexo masculino ( Giedd et al., 1996 ). As mudanças no volume estrutural dos gânglios da base e das regiões pré-frontais durante o desenvolvimento são interessantes à luz dos processos de desenvolvimento conhecidos (por exemplo, arborização dendrítica, morte celular, poda sináptica, mielinização) que ocorrem durante a infância e a adolescência. Esses processos permitem o ajuste fino e o fortalecimento das conexões entre as regiões pré-frontais e subcorticais, com o desenvolvimento e a aprendizagem podendo coincidir com um maior controle cognitivo. Como essas mudanças estruturais se relacionam com as mudanças cognitivas? Diversos estudos relacionaram a maturação estrutural do lobo frontal e a função cognitiva utilizando medidas neuropsicológicas e cognitivas (por exemplo, Sowell et al., 2003 ). Especificamente, foram relatadas associações entre os volumes regionais do córtex pré-frontal e dos gânglios da base, medidos por ressonância magnética, e medidas de controle cognitivo (ou seja, a capacidade de suprimir uma resposta inadequada em favor de outra ou de suprimir a atenção em relação a um atributo irrelevante do estímulo em favor de um atributo relevante do estímulo ( Casey, Trainor et al., 1997 )). Esses achados sugerem que as mudanças cognitivas se refletem em mudanças estruturais no cérebro e ressaltam a importância do desenvolvimento subcortical (gânglios da base), bem como cortical (por exemplo, córtex pré-frontal).

Estudos de DTI do desenvolvimento do cérebro humano
Os estudos de morfometria baseados em ressonância magnética revisados sugerem que as conexões corticais estão sendo refinadas com a eliminação de um excesso de sinapses e o fortalecimento de conexões relevantes com o desenvolvimento e a experiência. Avanços recentes na tecnologia de ressonância magnética, como a DTI (Imagem por Tensor de Difusão), fornecem uma ferramenta potencial para examinar o papel de tratos específicos de substância branca no desenvolvimento do cérebro e do comportamento com maior detalhe. Relevantes para este artigo são os estudos de neuroimagem que relacionaram o desenvolvimento de tratos de fibras com melhorias na capacidade cognitiva. Especificamente, foram demonstradas associações entre medidas baseadas em DTI do desenvolvimento da substância branca pré-frontal e o controle cognitivo em crianças. Em um estudo, o desenvolvimento dessa capacidade foi positivamente correlacionado com tratos de fibras pré-frontais-parietais ( Nagy, Westerberg e Klingberg, 2004 ), consistente com estudos de neuroimagem funcional que mostram recrutamento diferencial dessas regiões em crianças em relação a adultos.
Utilizando uma abordagem semelhante, Liston et al. (2005) demonstraram que os tratos de substância branca entre o córtex pré-frontal e os gânglios da base, bem como os tratos de fibras posteriores, continuam a se desenvolver da infância à idade adulta, mas apenas os tratos entre o córtex pré-frontal e os gânglios da base estão correlacionados com o controle de impulsos, medido pelo desempenho em uma tarefa de ir/não ir. Os tratos de fibras pré-frontais foram definidos por regiões de interesse identificadas em um estudo de fMRI utilizando a mesma tarefa. Em ambos os estudos de DTI do desenvolvimento, as medidas dos tratos de fibras correlacionaram-se com o desenvolvimento, mas a especificidade de tratos de fibras particulares com o desempenho cognitivo foi demonstrada pela dissociação do trato específico ( Liston et al., 2005 ) ou da capacidade cognitiva ( Nagy et al., 2004 ). Essas descobertas ressaltam a importância de examinar não apenas as mudanças regionais, mas também as mudanças relacionadas aos circuitos, ao fazer afirmações sobre alterações dependentes da idade nos substratos neurais do desenvolvimento cognitivo.
Estudos funcionais de ressonância magnética do desenvolvimento comportamental e cerebral
Embora as mudanças estruturais medidas por MRI e DTI tenham sido associadas a mudanças comportamentais durante o desenvolvimento, uma abordagem mais direta para examinar a associação estrutura-função é medir mudanças no cérebro e no comportamento simultaneamente, como no fMRI. A capacidade de medir mudanças funcionais no cérebro em desenvolvimento com a ressonância magnética tem um potencial significativo para o campo da ciência do desenvolvimento. No contexto do presente trabalho, fMRI fornece um meio para restringir as interpretações do comportamento do adolescente. Como afirmado anteriormente, acredita-se que o desenvolvimento do córtex pré-frontal desempenha um papel importante na maturação de habilidades cognitivas superiores, como a tomada de decisões e o controle cognitivo (Casey, Tottenham e Fossella 2002b; Casey, Trainor et al., 1997). Muitos paradigmas têm sido utilizados, juntamente com fMRI, para avaliar a base neurobiológica dessas habilidades, incluindo tarefas flanker, Stroop e go / nogo (Casey, Castellanos e outros, 1997; Casey, Giedd e Thomas, 2000a; Durston et al., 2003). Coletivamente, esses estudos mostram que as crianças recrutam regiões pré-frontais distintas, mas freqüentemente maiores e mais difusas, quando realizam essas tarefas do que os adultos. O padrão de atividade dentro das regiões cerebrais centrais para o desempenho da tarefa (ou seja, que se correlacionam com o desempenho cognitivo) torna-se mais focal ou sintonizado com a idade, enquanto regiões não correlacionadas com o desempenho da tarefa diminuem em atividade com a idade. Este padrão foi observado em ambos os cortes transversais (Brown et al., 2005) e estudos longitudinais (Durston et al., 2006) e através de uma variedade de paradigmas. Embora os estudos de neuroimagem não possam caracterizar definitivamente o mecanismo de tais mudanças de desenvolvimento (por exemplo, arborização dendrítica, poda sináptica), os achados refletem o desenvolvimento dentro e o refinamento de projeções de e para regiões ativadas do cérebro com maturação e sugerem que essas mudanças ocorram durante um período prolongado. período de tempo (Brown et al., 2005; Bunge, Dudukovic, Thomason, Vaidya e Gabrieli, 2002; Casey, Trainor et al., 1997; Casey et al., 2002a; Crone, Donohue, Honomichl, Wendelken e Bunge, 2006; Luna e outros, 2001; Moses et al., 2002; Schlaggar et al., 2002; Tamm et al., 2002; Thomas et al., 2004; Turkeltaub, Gareau, Flowers, Zeffiro e Eden, 2003).
Como essa metodologia pode nos informar se os adolescentes realmente carecem de controle cognitivo suficiente (impulsivos) ou se são propensos a comportamentos de risco em suas escolhas e ações? O controle de impulsos, medido por tarefas de controle cognitivo como a tarefa go/nogo, mostra um padrão linear de desenvolvimento ao longo da infância e adolescência, conforme descrito acima. No entanto, estudos recentes de neuroimagem começaram a examinar o processamento relacionado à recompensa específico para a tomada de riscos em adolescentes ( Bjork et al., 2004 ; Ernst et al., 2005 ; May et al., 2004 ). Esses estudos se concentraram principalmente na região do núcleo accumbens, uma porção dos gânglios da base envolvida na previsão de recompensa, em vez da caracterização do desenvolvimento dessa região em conjunto com regiões de controle de cima para baixo (córtex pré-frontal). Embora um estudo recente tenha demonstrado menor atividade pré-frontal ventral em adolescentes em comparação com adultos durante uma tarefa de tomada de decisão monetária sobre comportamento de risco ( Eshel, Nelson, Blair, Pine e Ernst, 2007 ).
No geral, poucos estudos examinaram como o desenvolvimento de circuitos de recompensa em regiões subcorticais (por exemplo, accumbens) muda em conjunto com o desenvolvimento de regiões pré-frontais corticais. Além disso, como essas mudanças neurais coincidem com a busca de recompensa, a impulsividade e os comportamentos de risco permanecem relativamente desconhecidos. Nosso modelo neurobiológico propõe que a combinação de maior responsividade a recompensas e imaturidade em áreas de controle comportamental pode influenciar os adolescentes a buscar ganhos imediatos, em vez de a longo prazo, talvez explicando seu aumento em comportamentos de risco e impulsivos. Acompanhamento de desenvolvimento subcortical (por exemplo, accumbens) e cortical (por exemplo, pré-frontal) de tomada de decisão em toda a infância até a idade adulta, fornece restrições adicionais sobre se as mudanças relatadas na adolescência são específicas para esse período de desenvolvimento ou refletem a maturação que está ocorrendo de forma constante um padrão um tanto linear desde a infância até a idade adulta.
Evidências empíricas de um estudo recente de fMRI ajudam a apoiar nosso modelo neurobiológico e adotam uma abordagem transicional para a compreensão da adolescência, examinando as mudanças que ocorrem antes e depois dessa fase. Neste estudo ( Galvan et al., 2006 ), examinamos as respostas comportamentais e neurais a manipulações de recompensa ao longo do desenvolvimento, com foco em regiões cerebrais implicadas na aprendizagem e no comportamento relacionados à recompensa em estudos de imagem com animais ( Hikosaka & Watanabe, 2000 ; Pecina, Cagniard, Berridge, Aldridge, & Zhuang, 2003 ; Schultz, 2006 ) e adultos (por exemplo, Knutson, Adams, Fong, & Hommer, 2001 ; O, Doherty, Kringelbach, Rolls, Hornak, Andrews, 2001 ; Zald et al., 2004 ) e em estudos sobre dependência ( Hyman & Malenka, 2001 ; Volkow & Li, 2004 ). Com base em modelos de roedores ( Laviola et al., 1999 ; Spear, 2000 ) e em trabalhos anteriores de neuroimagem ( Ernst et al., 2005 ), formulamos a hipótese de que, em comparação com crianças e adultos, os adolescentes apresentariam ativação exagerada do núcleo accumbens, em conjunto com um recrutamento menos maduro de regiões pré-frontais de controle descendente. Trabalhos recentes que demonstram conectividade funcional tardia entre essas regiões pré-frontais e subcorticais límbicas na adolescência em relação aos adultos fornecem um mecanismo para a falta de controle descendente dessas regiões ( Hare et al., 2007a ).
Nossos resultados foram consistentes com modelos em roedores ( Laviola, Macri, Morley-Fletcher e Adriani, 2003 ) e estudos de neuroimagem anteriores ( Ernst et al., 2005 ) que sugerem uma atividade aumentada do núcleo accumbens em resposta a recompensas durante a adolescência. De fato, em comparação com crianças e adultos, os adolescentes apresentaram uma resposta exagerada do núcleo accumbens em antecipação à recompensa. No entanto, tanto crianças quanto adolescentes mostraram uma resposta menos madura nas regiões de controle pré-frontal do que os adultos. Esses achados sugerem que diferentes trajetórias de desenvolvimento para essas regiões podem estar na base do aumento da atividade do núcleo accumbens, em comparação com crianças ou adultos, o que, por sua vez, pode estar relacionado ao aumento dos comportamentos impulsivos e de risco observados durante esse período de desenvolvimento (ver Figura 4 ).

O recrutamento diferencial de regiões pré-frontais e subcorticais tem sido relatado em diversos estudos de fMRI do desenvolvimento ( Casey et al., 2002b ; Monk et al., 2003 ; Thomas et al., 2004 ). Tipicamente, esses achados têm sido interpretados em termos de regiões pré-frontais imaturas, em vez de um desequilíbrio entre o desenvolvimento regional pré-frontal e subcortical. Considerando as evidências de que as regiões pré-frontais orientam ações apropriadas em diferentes contextos ( Miller & Cohen, 2001 ), a atividade pré-frontal imatura pode dificultar a estimativa adequada de resultados futuros e a avaliação de escolhas arriscadas, podendo, portanto, ser menos influente na valoração da recompensa do que o núcleo accumbens. Esse padrão é consistente com pesquisas anteriores que mostram atividade subcortical elevada, em relação à atividade cortical, quando as decisões são influenciadas por ganhos imediatos em detrimento de ganhos a longo prazo ( McClure, Laibson, Loewenstein & Cohen, 2004 ). Além disso, a atividade do núcleo accumbens demonstrou, por meio de ressonância magnética funcional (RMf), correlação positiva com comportamentos subsequentes de tomada de risco ( Kuhnen & Knutson, 2005 ). Durante a adolescência, em comparação com a infância ou a idade adulta, o córtex pré-frontal ventral imaturo pode não fornecer controle de cima para baixo suficiente sobre as regiões de processamento de recompensa robustamente ativadas (por exemplo, o núcleo accumbens), resultando em menor influência dos sistemas pré-frontais (córtex orbitofrontal) em relação ao núcleo accumbens na avaliação da recompensa.
Por que o cérebro seria programado para se desenvolver dessa maneira?
A adolescência é o período de transição entre a infância e a idade adulta, frequentemente coincidindo com a puberdade. A puberdade marca o início da maturação sexual ( Graber & Brooks-Gunn, 1998 ) e pode ser definida por marcadores biológicos. A adolescência pode ser descrita como uma transição progressiva para a idade adulta com um curso ontogenético indefinido ( Spear, 2000 ). Do ponto de vista evolutivo, a adolescência é o período em que se adquirem habilidades de independência para aumentar o sucesso após a separação da proteção familiar, embora isso também aumente as chances de ocorrência de situações prejudiciais (por exemplo, lesões, depressão, ansiedade, uso de drogas e dependência ( Kelley, Schochet & Landry, 2004 )). Comportamentos de busca por independência são prevalentes em diversas espécies, como o aumento das interações sociais direcionadas aos pares e a intensificação da busca por novidades e comportamentos de risco. Fatores psicossociais impactam a propensão do adolescente a comportamentos de risco. No entanto, o comportamento de risco é produto de um desequilíbrio biologicamente determinado entre o aumento da busca por novidades e sensações, em conjunto com a imaturidade da “autorregulação” ( Steinberg, 2004 ). Nossos dados neurobiológicos sugerem que isso ocorre por meio do desenvolvimento diferencial desses dois sistemas (límbico e de controle).
A especulação sugeriria que esse padrão de desenvolvimento é uma característica evolucionária. Você precisa se envolver em comportamentos de alto risco para deixar sua família e sua aldeia em busca de um parceiro e assumir riscos, ao mesmo tempo em que os hormônios levam os adolescentes a procurar parceiros sexuais. Na sociedade de hoje, quando a adolescência pode se estender indefinidamente, com crianças morando com pais e tendo dependência financeira e escolhendo parceiros mais tarde na vida, essa evolução pode ser considerada inadequada.
Há evidências, em diversas espécies, de uma maior busca por novidades e propensão ao risco durante a adolescência. A busca por pares da mesma idade e as brigas com os pais, que ajudam o adolescente a se afastar do território familiar para acasalar, são observadas em outras espécies, incluindo roedores, primatas não humanos e algumas aves ( Spear, 2000 ). Em comparação com adultos, ratos periadolescentes demonstram um aumento nos comportamentos de busca por novidades em um paradigma de livre escolha ( Laviola et al., 1999 ). Evidências neuroquímicas indicam que o equilíbrio no cérebro adolescente entre os sistemas dopaminérgicos cortical e subcortical começa a se deslocar para níveis mais elevados de dopamina cortical durante a adolescência ( Spear, 2000 ). Uma inervação dopaminérgica prolongada semelhante, da adolescência à idade adulta, também foi demonstrada no córtex pré-frontal de primatas não humanos ( Rosenberg & Lewis, 1995 ). Assim, essa aparente maior propensão ao risco parece ser comum a diversas espécies e ter importantes propósitos adaptativos.
Predisposições biológicas, desenvolvimento e risco
Diferenças individuais no controle de impulsos e na tomada de riscos são reconhecidas na psicologia há algum tempo ( Benthin, Slovic e Severson, 1993 ). Talvez um dos exemplos clássicos de diferenças individuais relatadas nessas habilidades na literatura de psicologia social, cognitiva e do desenvolvimento seja a capacidade de adiar a gratificação ( Mischel, Shoda e Rodriguez, 1989 ). A capacidade de adiar a gratificação é tipicamente avaliada em crianças de 3 a 4 anos de idade. A criança é questionada se prefere uma pequena recompensa (um biscoito) ou uma grande recompensa (dois biscoitos). Em seguida, a criança é informada de que o experimentador sairá da sala para se preparar para as próximas atividades e é explicado que, se ela permanecer sentada e não comer um biscoito, receberá a recompensa maior. Se a criança não comer ou não puder esperar, deverá tocar uma campainha para chamar o experimentador e, assim, receber a recompensa menor. Uma vez que fique claro que a criança compreendeu a tarefa, ela é sentada à mesa com as duas recompensas e a campainha. As distrações na sala são minimizadas, sem brinquedos, livros ou figuras. O experimentador retorna após 15 minutos ou depois que a criança toca a campainha, come a recompensa ou demonstra qualquer sinal de desconforto. Mischel mostrou que as crianças geralmente se comportam de duas maneiras: (1) ou tocam a campainha quase imediatamente para receber o biscoito, o que significa que recebem apenas um; ou (2) esperam e otimizam seus ganhos, recebendo os dois biscoitos. Essa observação sugere que alguns indivíduos são melhores do que outros em sua capacidade de controlar impulsos diante de incentivos altamente relevantes, e esse viés pode ser detectado na primeira infância ( Mischel et al., 1989 ) e parece persistir durante a adolescência e o início da vida adulta ( Eigsti et al., 2006 ).
O que poderia explicar as diferenças individuais na tomada de decisões e comportamentos ótimos? Alguns teóricos postularam que o circuito dopaminérgico mesolímbico, implicado no processamento de recompensas, está na base do comportamento de risco. Diferenças individuais nesse circuito, como variantes alélicas em genes relacionados à dopamina, resultando em níveis insuficientes ou excessivos de dopamina em regiões subcorticais, podem estar relacionadas à propensão a se envolver em comportamentos de risco ( O'Doherty, 2004 ). O núcleo accumbens demonstrou aumento de atividade imediatamente antes da tomada de decisões arriscadas em paradigmas de risco monetário ( Kuhnen & Knutson, 2005 ; Matthews et al., 2004 ; Montague & Berns, 2002 ) e, como descrito anteriormente, adolescentes apresentam atividade exagerada do accumbens em resposta a resultados recompensadores, quando comparados a crianças ou adultos ( Ernst et al., 2005 ; Galvan et al., 2006 ). Em conjunto, esses dados sugerem que os adolescentes podem ser mais propensos a escolhas arriscadas como grupo ( Gardener & Steinberg, 2005 ), mas alguns adolescentes serão mais propensos do que outros a se envolver em comportamentos de risco, o que os coloca em maior risco de consequências negativas. Portanto, é importante considerar a variabilidade individual ao examinar as complexas relações cérebro-comportamento relacionadas à tomada de risco e ao processamento de recompensas em populações em desenvolvimento.
Para explorar as diferenças individuais no comportamento de tomada de risco, Galvan et al. (2007) examinaram recentemente a associação entre a atividade em circuitos neurais relacionados à recompensa, na antecipação de uma grande recompensa monetária, e medidas de traços de personalidade como tomada de risco e impulsividade na adolescência. Foram coletadas imagens de ressonância magnética funcional e escalas de autoavaliação anônimas sobre comportamento de risco, percepção de risco e impulsividade em indivíduos com idades entre 7 e 29 anos. Observou-se uma associação positiva entre a atividade do núcleo accumbens e a probabilidade de envolvimento em comportamento de risco ao longo do desenvolvimento. Essa atividade variou em função da percepção individual das consequências positivas ou negativas antecipadas para tais comportamentos. Os indivíduos que percebiam os comportamentos de risco como levando a consequências graves apresentaram menor ativação do núcleo accumbens em resposta à recompensa. Essa associação foi impulsionada principalmente pelas crianças, enquanto os adultos avaliaram as consequências de tais comportamentos como possíveis. As avaliações de impulsividade não foram associadas à atividade do núcleo accumbens, mas sim à idade. Esses resultados sugerem que, durante a adolescência, alguns indivíduos podem ser mais propensos a se envolver em comportamentos de risco devido a mudanças de desenvolvimento em conjunto com a variabilidade na predisposição de um determinado indivíduo a se envolver em comportamentos de risco, em vez de simples mudanças na impulsividade (ver Fig. 5 ).

O comportamento adolescente tem sido repetidamente caracterizado como impulsivo e arriscado ( Steinberg, 2004 , 2007 ), contudo, esta revisão da literatura de neuroimagem sugere diferentes substratos neurobiológicos e diferentes trajetórias de desenvolvimento para esses comportamentos. Especificamente, a impulsividade está associada ao desenvolvimento imaturo do córtex pré-frontal ventral e diminui gradualmente da infância à idade adulta ( Casey, Galvan et al., 2005 ). A correlação negativa entre os níveis de impulsividade e a idade no estudo de Galvan et al. (2007) reforça ainda mais essa noção. Em contraste, a tomada de riscos está associada a um aumento na atividade do núcleo accumbens ( Kuhnen & Knutson, 2005 ; Matthews et al., 2004 ; Montague & Berns, 2002 ), que é exacerbada em adolescentes, em comparação com crianças e adultos ( Ernst et al., 2005 ; Galvan et al., 2006 ). Assim, as escolhas e o comportamento dos adolescentes não podem ser explicados apenas pela impulsividade ou pelo desenvolvimento prolongado do córtex pré-frontal, pois, nesse caso, seria previsto que as crianças seriam mais propensas a correr riscos. As descobertas fornecem uma base neural para explicar por que alguns adolescentes correm mais riscos do que outros, mas também oferecem uma base para entender como o comportamento dos adolescentes difere do de crianças e adultos em relação à propensão a correr riscos.
Em conjunto, esses dados sugerem que, embora os adolescentes como grupo sejam considerados propensos a comportamentos de risco ( Gardener & Steinberg, 2005 ), alguns adolescentes serão mais propensos do que outros a se envolverem em comportamentos de risco, o que os coloca em maior risco de consequências negativas. Essas descobertas ressaltam a importância de se considerar a variabilidade individual ao examinar as complexas relações entre cérebro e comportamento relacionadas à tomada de riscos e ao processamento de recompensas em populações em desenvolvimento. Além disso, essas diferenças individuais e de desenvolvimento podem ajudar a explicar a vulnerabilidade de alguns indivíduos à tomada de riscos associada ao uso de substâncias e, em última instância, ao vício.
Conclusões
Estudos de imagem em humanos mostram alterações estruturais e funcionais nas regiões frontostriatais (Giedd et al., 1996, 1999; Jernigan et al., 1991; Sowell e outros, 1999; para revisão, Casey, Galvan e outros, 2005) que parecem aumentar paralelamente o controlo cognitivo e a auto-regulação (Casey, Trainor et al., 1997; Luna & Sweeney, 2004; Luna e outros, 2001; Rubia et al., 2000; Steinberg, 2004; Veja também Steinberg, 2008, esse problema). Essas mudanças parecem mostrar uma mudança na ativação de regiões pré-frontais de recrutamento difuso para mais focal ao longo do tempo (Brown et al., 2005; Bunge et al., 2002; Casey, Trainor et al., 1997; Durston et al., 2006; Moses et al., 2002) e recrutamento elevado de regiões subcorticais durante a adolescência (Casey et al., 2002a; Durston et al., 2006; Luna e outros, 2001). Embora os estudos de neuroimagem não possam caracterizar definitivamente o mecanismo dessas mudanças no desenvolvimento, essas mudanças no volume e na estrutura podem refletir o desenvolvimento interno e o refinamento das projeções para e a partir dessas regiões do cérebro durante a maturação, sugerindo o ajuste fino do sistema com o desenvolvimento.
Em conjunto, as descobertas sintetizadas aqui indicam que o aumento do comportamento de risco na adolescência está associado a diferentes trajetórias de desenvolvimento de regiões subcorticais de prazer e de controle cortical. Essas mudanças desenvolvimentais podem ser exacerbadas por diferenças individuais na atividade dos sistemas de recompensa. Embora a adolescência seja reconhecida como um período caracterizado pela busca por recompensas e comportamentos de risco ( Gardener & Steinberg, 2005 ; Spear, 2000 ), as diferenças individuais nas respostas neurais à recompensa predispõem alguns adolescentes a correr mais riscos do que outros, colocando-os em maior risco de consequências negativas. Essas descobertas fornecem uma base crucial ao sintetizar as diversas descobertas relacionadas ao comportamento de risco na adolescência e ao compreender as diferenças individuais e os marcadores de desenvolvimento para a propensão a se envolver em comportamentos negativos.
Agradecimentos
Este trabalho foi apoiado em parte por doações do Instituto Nacional de Abuso de Drogas R01 DA18879 e do Instituto Nacional de Saúde Mental 1P50 MH62196.
Referências
- Benthin A, Slovic P, Severson H. Um estudo psicométrico da percepção de risco do adolescente. Jornal da Adolescência. 1993;16: 153 – 168. [PubMed]
- Bjork JM, B Knutson, Fong GW, DM Caggiano, Bennett SM, Hommer DW. Ativação cerebral induzida por estímulo em adolescentes: semelhanças e diferenças entre adultos jovens. Journal of Neuroscience. 2004;24: 1793 – 1802. [PubMed]
- Bjorkland DF. O papel do conhecimento conceitual no desenvolvimento da organização na memória das crianças. Em: Brainerd CJ, Pressley M, editores. Processos básicos no desenvolvimento da memória: Progresso na pesquisa do desenvolvimento cognitivo. Nova Iorque: Springer-Verlag; 1985. pp. 103 – 142.
- Bjorkland DF. Como mudanças de idade na base de conhecimento contribuem para o desenvolvimento da memória infantil: uma revisão interpretativa. Revisão de desenvolvimento. 1987;7: 93 – 130.
- Bourgeois JP, Goldman-Rakic PS, Rakic P. Sinaptogênese no córtex pré-frontal de macacos rhesus. Córtex cerebral. 1994;4: 78 – 96. [PubMed]
- Brainerd CJ, Reyna VF. Independência de memória e interferência de memória no desenvolvimento cognitivo. Revisão Psicológica. 1993;100: 42 – 67. [PubMed]
- Brown TT, Lugar HM, Coalson RS, FM Miezin, Petersen SE, Schlaggar BL. Mudanças de desenvolvimento na organização funcional cerebral humana para geração de palavras. Córtex cerebral. 2005;15: 275 – 290. [PubMed]
- Bunge SA, NM Dudukovic, Thomason ME, Vaidya CJ, Gabrieli JD. Contribuições do lóbulo frontal imaturo para o controle cognitivo em crianças: evidências de fMRI. Neurônio. 2002;33: 301 – 311. [PubMed]
- Caso R. Validação de um construto de capacidade neo-Piagetiana. Jornal de Psicologia Infantil Experimental. 1972;14: 287 – 302.
- Caso R. Desenvolvimento intelectual: nascimento para a vida adulta. Nova York: Academic Press; 1985.
- Casey BJ, Castellanos FX, Giedd JN, Marsh WL, Hamburger SD, Schubert AB. et al. Implicação do circuito frontostriatal direito na inibição de resposta e no distúrbio de déficit de atenção / hiperatividade. Jornal da Academia Americana de Psiquiatria Infantil e Adolescente. 1997;36: 374 – 383. [PubMed]
- Casey BJ, Galvan A, Hare TA. Mudanças na organização funcional cerebral durante o desenvolvimento cognitivo. Opinião atual em Neurobiologia. 2005;15: 239 – 244. [PubMed]
- Casey BJ, Giedd JN, Thomas KM. Desenvolvimento cerebral estrutural e funcional e sua relação com o desenvolvimento cognitivo. Psicologia Biológica. 2000a;54: 241 – 257. [PubMed]
- Casey BJ, Thomas KM, MC Davidson, Kunz K, Franzen PL. Dissociação funcional do estriado e do hipocampo com uma tarefa de compatibilidade estímulo-resposta. Journal of Neuroscience. 2002a;22: 8647 – 8652. [PubMed]
- Casey BJ, Thomas KM, Welsh TF, RD Badgaiyan, Eccard CH, Jennings JR, et al. Dissociação de conflito de resposta, seleção atencional e expectativa com ressonância magnética funcional. Anais da Academia Nacional de Ciências. 2000b;97: 8728 – 8733.
- Casey BJ, Tottenham N, Fossella J. Abordagens clínicas, de imagem, de lesões e genéticas para um modelo de controle cognitivo. Psicobiologia do Desenvolvimento. 2002b;40: 237 – 254. [PubMed]
- Casey BJ, Tottenham N, Liston C, Durston S. Imaginando o cérebro em desenvolvimento: O que aprendemos sobre o desenvolvimento cognitivo? Tendências na Ciência Cognitiva. 2005;9: 104 – 110.
- Casey BJ, RJ Trainor, Orendi JL, AB Schubert, Nystrom LE, Giedd JN, et al. Um estudo de MRI funcional do desenvolvimento da ativação pré-frontal durante o desempenho de uma tarefa sem movimento. Jornal de neurociência cognitiva. 1997;9: 835 – 847.
- Crone E, Donohue S, Honomichl R, Wendelken C, Bunge S. Regiões cerebrais que mediam o uso de regras flexíveis durante o desenvolvimento. Journal of Neuroscience. 2006;26: 11239 – 11247. [PubMed]
- Dempster FN. Resistência à interferência: mudanças no desenvolvimento de um mecanismo básico de processamento. Em: Howe ML, Pasnak R, editores. Temas emergentes no desenvolvimento cognitivo Volume 1: Fundamentos. Nova Iorque: Springer; 1993. pp. 3 – 27.
- Diamante A. Desenvolvimento da capacidade de usar a recordação para guiar a ação, conforme indicado pelo desempenho dos bebês na AB. Desenvolvimento infantil. 1985;56: 868 – 883. [PubMed]
- Durston S, MC Davidson, Thomas KM, Worden MS, N Tottenham, Martinez A, et al. Manipulação paramétrica de conflitos e competição de resposta usando ressonância magnética relacionada a eventos de ensaio misto rápido. Neuroimagem. 2003;20: 2135 – 2141. [PubMed]
- Durston S, Davidson MC, N Tottenham, Galvan A, Spicer J, Fossella J, et al. Uma mudança da atividade cortical difusa para a focal com o desenvolvimento. Ciência do Desenvolvimento. 2006;1: 18 – 20. [PubMed]
- Durston S, Pol Hulshoff HE, Casey BJ, Giedd JN, JK Buitelaar, van Engeland H. RM anatômica do cérebro humano em desenvolvimento: O que aprendemos? Jornal da Academia Americana de Psiquiatria Infantil Adolescente. 2001;40: 1012 – 1020.
- Eaton LK, Kinchen S, Ross J, Hawkins J, WA Harris, Lowry R, et al. Vigilância de comportamento de risco juvenil - Estados Unidos, 2005, resumos de vigilância. Relatório semanal de morbidade e mortalidade. 2006;55: 1 – 108. [PubMed]
- Eigsti IM, Zayas V, M Mischel, Shoda Y, Ayduk O, Dadlani MB, e outros. Prever o controle cognitivo desde a pré-escola até o final da adolescência e a idade adulta jovem. Ciências psicológicas. 2006;17: 478 – 484. [PubMed]
- Ernst M. Nelson EE, Jazbec S, McClure EB, Monk CS, Leibenluft E, et al. Amígdala e núcleo accumbens em resposta ao recebimento e omissão de ganhos em adultos e adolescentes. Neuroimagem. 2005;25: 1279 – 1291. [PubMed]
- Eshel N, Nelson EE, Blair RJ, Pine DS, Ernst M. Substratos neurais de seleção de escolha em adultos e adolescentes: Desenvolvimento dos córtices ventrolateral pré-frontal e cingulado anterior. Neuropsychologia. 2007;45: 1270 – 1279. [Artigo gratuito do PMC] [PubMed]
- Flavell JH, Feach DR, Chinsky JM. Ensaio verbal espontâneo em uma tarefa de memória em função da idade. Desenvolvimento infantil. 1966;37: 283 – 299. [PubMed]
- Galvan A, Hare TA, Parra CE, Penn J, H Voss, Glover G, et al. O desenvolvimento anterior do accumbens em relação ao córtex orbitofrontal pode estar por trás do comportamento de risco em adolescentes. Journal of Neuroscience. 2006;26: 6885 – 6892. [PubMed]
- Galvan A, Hare T, H Voss, Glover G, Casey BJ. Assunção de riscos e o cérebro do adolescente: quem está em risco? Ciência do Desenvolvimento. 2007;10: F8 - F14. [PubMed]
- Gardener M, Steinberg L. Influência dos pares na tomada de risco, preferência de risco e tomada de decisão arriscada na adolescência e na idade adulta: um estudo experimental. Psicologia do Desenvolvimento. 2005;41: 625 – 635. [PubMed]
- Giedd JN. Ressonância magnética estrutural do cérebro adolescente. Anais da Academia de Ciências de Nova York. 2004;1021: 77 – 85. [PubMed]
- Giedd JN, Blumenthal J, Jeffries NO, Castellanos FX, LiuH, Zijdenbos A, et al. Desenvolvimento cerebral durante a infância e adolescência: um estudo longitudinal de ressonância magnética. Nature Neuroscience. 1999;2: 861 – 863.
- Giedd JN, Snell JW, Lange N., Rajapakse JC, Casey BJ, Kozuch PL, e outros. Ressonância magnética quantitativa do desenvolvimento do cérebro humano: Idades 4 – 18. Córtex cerebral. 1996;6: 551 – 560. [PubMed]
- Gogtay N, Giedd JN, L. Lusk, KM Hayashi, Greenstein D, Vaituzis AC, et al. Mapeamento dinâmico do desenvolvimento cortical humano durante a infância até o início da idade adulta. Anais da Academia Nacional de Ciências dos Estados Unidos da América. 2004;101: 8174 – 8179. [Artigo gratuito do PMC] [PubMed]
- Graber JA, Brooks-Gunn J. Puberty. Em: Blechman EA, Brownell KD, editores. Medicina comportamental e mulheres um manual abrangente. Nova Iorque, NY: Guilford Press; 1998. pp. 51 – 58.
- Hare TA, Voss HU, Glover GH, Casey BJ. O cérebro adolescente e o risco potencial de ansiedade e depressão. 2007a Enviado para publicação.
- Hare TA, Voss HU, Glover GH, Casey BJ. A competição entre os sistemas límbicos pré-frontais e subcorticais está por trás da reatividade emocional durante a adolescência. 2007b Enviado para publicação.
- Harnishfeger KK, Bjorkland F. A ontogênese dos mecanismos de inibição: uma abordagem renovada ao desenvolvimento cognitivo. Em: Howe ML, Pasnek R, editores. Temas emergentes no desenvolvimento cognitivo. Vol. 1. Nova Iorque: Springer-Verlag; 1993. pp. 28 – 49.
- Hikosaka K, Watanabe M. Atraso na atividade dos neurônios pré-frontais orbitais e laterais do macaco variando com diferentes recompensas. Córtex cerebral. 2000;10: 263 – 271. [PubMed]
- Huttenlocher PR. Densidade sináptica no córtex frontal humano - mudanças no desenvolvimento e efeitos do envelhecimento. Pesquisa do cérebro. 1979;163: 195 – 205. [PubMed]
- Hyman SE, Malenka RC. Dependência e o cérebro: A neurobiologia da compulsão e sua persistência. Nature Reviews Neurociência. 2001;2: 695 – 703.
- Jernigan TL, Zisook S, RK Heaton, Moranville JT, Jesselink JR, Braff DL. Anormalidades na ressonância magnética em núcleos lenticulares e córtex cerebral na esquizofrenia. Arquivos da psiquiatria geral. 1991;48: 811 – 823.
- Keating DP, Bobbitt BL. Diferenças individuais e de desenvolvimento nos componentes de processamento cognitivo da capacidade mental. Desenvolvimento infantil. 1978;49: 155 – 167.
- Kelley AE, Schochet T, Landry C. Anais da Academia de Ciências de Nova York. 2004;1021: 27 – 32. [PubMed]
- Knutson B, Adams CM, Fong GW, Hommer D. Antecipação do aumento da recompensa monetária seletivamente recruta o núcleo accumbens. Journal of Neuroscience. 2001;21: RC159. [PubMed]
- Kuhnen CM, Knutson B. A base neural do risco financeiro. Neurônio. 2005;47: 763 – 770. [PubMed]
- Laviola G, Adriani W., Terranova ML, Gerra G. Psychobiological fatores de risco para a vulnerabilidade aos psicoestimulantes em adolescentes humanos e modelos animais. Neurociência e Revisões BioComportamentais. 1999;23: 993 – 1010. [PubMed]
- Laviola G, Macri S, S Morley-Fletcher, Adriani W. Resumo comportamento de risco em ratos adolescentes: determinantes psicobiológicos e influência epigenética precoce. Neurociência e Revisões BioComportamentais. 2003;27: 19 – 31. [PubMed]
- Liston C, Watts R, N Tottenham, Davidson MC, Niogi S, Ulug AM, et al. A microestrutura frontostriatal modula o recrutamento eficiente do controle cognitivo. Córtex cerebral. 2005;16: 553 – 560. [PubMed]
- Luna B, Sweeney JA. O surgimento da função cerebral colaborativa: estudos de FMRI do desenvolvimento da inibição da resposta. Anais da Academia de Ciências de Nova York. 2004;1021: 296 – 309. [PubMed]
- Luna B, Thulborn KR, Munoz DP, Merriam EP, Garver KE, Minshew NJ, et al. A maturação da função cerebral amplamente distribuída sustenta o desenvolvimento cognitivo. Neuroimagem. 2001;13: 786 – 793. [PubMed]
- Matthews SC, et al. Ativação seletiva do núcleo accumbens durante a tomada de decisão de tomada de risco. Neuroreport. 2004;15: 2123 – 2127. [PubMed]
- May JC, Delgado MR, Dahl RE, Stenger VA, Ryan ND, Fiez JA, et al. Ressonância magnética funcional relacionada ao evento de circuitos cerebrais relacionados à recompensa em crianças e adolescentes. Psiquiatria Biológica. 2004;55: 359 – 366. [PubMed]
- McClure SM, Laibson DI, Loewenstein G. Cohen JD. Sistemas neurais separados valorizam recompensas monetárias imediatas. Ciência. 2004;306: 503 – 507. [PubMed]
- Miller EK, Cohen JD. Uma teoria integrativa da função do córtex pré-frontal. Revisão Anual da Neurociência. 2001;24: 167 – 202.
- Mischel W, Shoda Y, Rodriguez MI. Atraso de gratificação em crianças. Ciência. 1989;244: 933 – 938. [PubMed]
- Monk CS, McClure EB, Nelson EE, Zarahn E, RM RM, Leibenluft E, et al. A imaturidade do adolescente no envolvimento cerebral relacionado à atenção às expressões faciais emocionais. Neuroimagem. 2003;20: 420 – 428. [PubMed]
- Montague PR, Berns GS. Economia neural e os substratos biológicos da avaliação. Neurônio. 2002;36: 265 – 284. [PubMed]
- Moisés P, Roe K, Buxton RB, Wong EC, Frank LR, Stiles J. RM funcional do processamento global e local em crianças. Neuroimagem. 2002;16: 415 – 424. [PubMed]
- Munakata Y, Yerys BE. Todos juntos agora: quando as dissociações entre conhecimento e ação desaparecem. Ciência Psicológica. 2001;12: 335 – 337.
- Nagy Z, Westerberg H, Klingberg T. A maturação da matéria branca está associada ao desenvolvimento de funções cognitivas durante a infância. Jornal de neurociência cognitiva. 2004;16: 1227 – 1233. [PubMed]
- O'Doherty J, Kringelbach ML, Rolos ET, Hornak J, Andrews C. Resumo representações de recompensa e punição no córtex orbitofrontal humano. Natureza Neurosci. 2001;4: 95 – 102. [PubMed]
- O'Doherty JP. Representações de recompensa e aprendizado relacionado a recompensas no cérebro humano: percepções da neuroimagem. Opiniões atuais em Neurobiologia. 2004;14: 769 – 776.
- Pascual-Leone JA. Um modelo matemático para a transição nos estágios de desenvolvimento de Piaget. Acta Psychologica. 1970;32: 301 – 345.
- Pecina S, Cagniard B, KC Berridge, Aldridge JW, Zhuang X. Camundongos mutantes hiperdopaminérgicos têm maior “desejo”, mas não “gostar” de recompensas doces. Journal of Neuroscience. 2003;23: 9395 – 9402. [PubMed]
- Reyna VF, Farley F. Risco e racionalidade na tomada de decisão do adolescente: Implicações para a teoria, prática e políticas públicas. Ciência psicológica no interesse público. 2006;7: 1 – 44.
- Rosenberg DR, Lewis DA. Maturação pós-natal da inervação dopaminérgica de córtex pré-frontal e motor de macaco: Análise imuno-histoquímica de tirosina hidroxilase. O Journal of Comparative Neurology. 1995;358: 383 – 400. [PubMed]
- Rubia K, Overmeyer S, Taylor E., Brammer M, Williams SC, Simmons A, et al. Frontalização funcional com a idade: Mapeamento de trajetórias neurodesenvolvimentais com fMRI. Neurociência e Revisões BioComportamentais. 2000;24: 13 – 19. [PubMed]
- Schlaggar BL, Brown TT, Lugar HM, KM Visscher, Miezin FM, Petersen SE. Diferenças neuroanatômicas funcionais entre adultos e crianças em idade escolar no processamento de palavras isoladas. Ciência. 2002;296: 1476 – 1479. [PubMed]
- Schultz W. Teorias comportamentais e a neurofisiologia da recompensa. Revisões Anuais de Psicologia. 2006;57: 87 – 115.
- Sowell ER, Peterson BS, Thompson PM, Bem-vindo SE, Henkenius AL, Toga AW. Mapeamento da mudança cortical ao longo da vida humana. Nature Neuroscience. 2003;6: 309 – 315.
- Sowell ER, Thompson PM, Holmes CJ, TL Jernigan, Toga AW. Evidência in vivo de maturação cerebral pós-adolescente em regiões frontais e estriatais. Nature Neuroscience. 1999;2: 859 – 861.
- Sowell ER, Thompson PM, Toga AW. Mapeamento de mudanças no córtex humano ao longo da vida. Neuro cientista. 2004;10: 372 – 392. [PubMed]
- Spear LP. O cérebro do adolescente e as manifestações comportamentais relacionadas à idade. Neurociência e Revisões BioComportamentais. 2000;24: 417 – 463. [PubMed]
- Steinberg L. Assumir riscos na adolescência: o que muda e por quê? Anais da Academia de Ciências de Nova York. 2004;1021: 51 – 58. [PubMed]
- Steinberg L. Assunção de riscos na adolescência: novas perspectivas da ciência cerebral e comportamental. Direções atuais na ciência psicológica. 2007;16: 55 – 59.
- Steinberg L. Uma perspectiva de neurociência social sobre o risco do adolescente. Revisão de desenvolvimento. 2008;28: 78 – 106. [Artigo gratuito do PMC] [PubMed]
- Tamm L, Menon V, Reiss AL. Maturação da função cerebral associada à inibição da resposta. Jornal da Academia Americana de Psiquiatria Infantil e Adolescente. 2002;41: 1231 – 1238. [PubMed]
- Thomas KM, Hunt RH, N Vizueta, Sommer T, Durston S, Yang Y, et al. Evidência de diferenças de desenvolvimento na aprendizagem de seqüência implícita: Um estudo FMRI de crianças e adultos. Jornal de neurociência cognitiva. 2004;16: 1339 – 1351. [PubMed]
- Turkeltaub PE, Gareau L., Flores DL, Zeffiro TA, Eden GF. Desenvolvimento de mecanismos neurais para leitura. Nature Neuroscience. 2003;6: 767 – 773.
- Volkow ND, Li TK. Toxicodependência: A neurobiologia do comportamento deu errado. Nature Reviews Neurociência. 2004;5: 963 – 970.
- Yurgelun-Todd D. Alterações emocionais e cognitivas durante a adolescência. Opinião atual em Neurobiologia. 2007;17: 251 – 257. [PubMed]
- Zald DH, Boileau I, El-Dearedy W, Gunn R, Mc Glone F, Dichter GS, et al. Transmissão de dopamina no estriado humano durante tarefas de recompensa monetária. Journal of Neuroscience. 2004;24: 4105 – 4112. [PubMed]