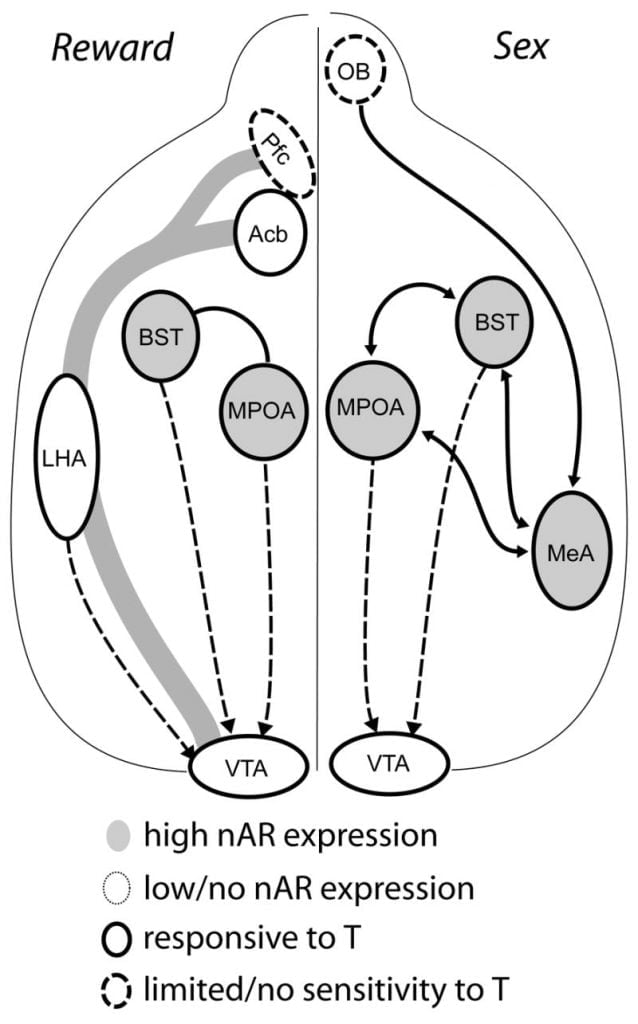
COMENTÁRIOS: Excelente revisão de quase todas as pesquisas relevantes sobre receptores androgênicos, dopamina e função sexual. Desenho fantástico das inter-relações do circuito hipotálamo-recompensa.
Horm Behav. 2008 maio; 53 (5) : 647–658.
Publicado online em 13 de fevereiro de 2008. doi: 10.1016/j.yhbeh.2008.01.010
Sumário
A adolescência está associada ao aumento dos comportamentos de busca de prazer, que, por sua vez, são moldados pela ativação puberal do eixo hipotalâmico-hipofisário-gonadal. Em modelos animais de comportamentos naturalmente recompensadores, como o sexo, os andrógenos testiculares contribuem para o desenvolvimento e a expressão do comportamento no sexo masculino. Para efetuar a maturação comportamental, o cérebro sofre remodelação significativa durante a adolescência, e muitas das alterações são igualmente sensíveis aos andrógenos, presumivelmente atuando através dos receptores androgênicos (AR). Dada a delicada interação dos hormônios gonadais e o desenvolvimento do cérebro, não é surpresa que a interrupção dos níveis hormonais durante esse período sensível altere significativamente o comportamento de adolescentes e adultos. Em hamsters machos, a exposição à testosterona durante a adolescência é necessária para a expressão normal do comportamento sexual adulto. Machos privados de andrógenos durante a puberdade apresentam déficits sustentados no acasalamento. Por outro lado, os androgênios isoladamente não são suficientes para induzir o acasalamento em machos pré-púberes, embora o RA cerebral esteja presente antes da puberdade. Neste contexto, o uso generalizado de esteróides anabólicos androgênicos (AAS) durante a adolescência é uma preocupação significativa. O abuso de EAA tem o potencial de alterar o tempo e os níveis de andrógenos em adolescentes do sexo masculino. Nos hamsters, a exposição do adolescente AAS aumenta a agressividade e causa mudanças duradouras nos sistemas de neurotransmissores. Além disso, os EAA são reforçados, como demonstrado pela auto-administração de testosterona e outros AAS. No entanto, evidências recentes sugerem que os efeitos reforçadores dos andrógenos podem não exigir AR clássica. Portanto, um exame mais aprofundado das interações entre andrógenos e comportamentos de recompensa no cérebro adolescente é necessário para uma melhor compreensão do abuso de AAS.
Visão geral
A adolescência desperta no cérebro tanto o prazer quanto o risco. Em adolescentes, isso frequentemente se manifesta na forma de experimentação com drogas e sexo. Nos Estados Unidos, a idade mediana da primeira relação sexual em homens é de 16.4 anos, e 65% já tiveram relações sexuais até o último ano do ensino médio ( Kaiser Family Foundation, 2005 ). Da mesma forma, essa população apresenta as maiores taxas de uso de drogas ilícitas nos Estados Unidos. De acordo com a Pesquisa Nacional sobre Uso de Drogas e Saúde de 2004, 38% dos homens de 18 a 25 anos usaram alguma droga ilícita no último ano ( SAMHSA/OAS, 2005 ). Além disso, 31% dos adolescentes do sexo masculino usaram drogas ou álcool em seu último encontro sexual ( Kaiser Family Foundation, 2005 ). Ademais, a adolescência é um período crucial na etiologia de certas psicopatologias, como depressão, ansiedade, transtornos alimentares e transtorno de conduta. Nossa hipótese é que a secreção puberal de hormônios gonadais, sua ativação de receptores de esteroides no cérebro e a interação entre hormônios e experiências no desenvolvimento cerebral adolescente contribuem para as mudanças comportamentais observadas durante a adolescência.
Nosso objetivo aqui é revisar as evidências de que andrógenos gonadais medeiam a maturação adolescente e o desempenho adulto de comportamentos motivados, bem como as propriedades recompensadoras desses comportamentos. Também apresentamos evidências de que a própria testosterona é gratificante, o que provavelmente contribui para mudanças maturacionais em comportamentos motivados durante a adolescência, quando os níveis de testosterona aumentam. O foco deste artigo é sobre nossos estudos de circuitos neurais subjacentes ao comportamento sexual masculino, particularmente no hamster sírio, com ênfase especial na interação entre testosterona e dopamina (DA). Nós propomos que os andrógenos da puberdade têm efeitos tanto transitórios quanto a longo prazo em circuitos de recompensa e comportamento motivado. Além disso, hipotetizamos que a suplementação com andrógenos exógenos na forma de anabólicos esteróides androgênicos (EAA) aumenta as influências normais dos andrógenos da puberdade, afetando adversamente o desenvolvimento do cérebro e do comportamento do adolescente.
Adolescência como um período sensível para o desenvolvimento do cérebro
Em última análise, o cérebro é tanto um gatilho quanto um alvo para a ação androgênica durante a adolescência. Em meninos (<12 anos) e hamsters jovens (<28 dias de idade), os androgênios circulantes e as gonadotrofinas estão em níveis basais. Como a secreção do hormônio luteinizante da glândula pituitária anterior aumenta em resposta ao hormônio liberador de gonadotrofina hipotalâmica, as concentrações de testosterona circulante aumentam significativamente. Isso ocorre no estágio II / III de Tanner (14 anos) em meninos e aos 28 dias de idade em hamsters. No momento em que os meninos atingem o estágio IV / V de Tanner (cerca de 16 anos de idade) ou quando os hamsters têm 50–60 dias de idade, a testosterona endógena está na faixa dos homens adultos. A secreção do hormônio puberal coincide com o período da adolescência, que ocorre aproximadamente dos 12 aos 20 anos de idade no homem. Os hormônios da puberdade atuam não apenas nos tecidos periféricos para causar o aparecimento de características sexuais secundárias que são os sinais evidentes da puberdade, mas também atuam centralmente para influenciar tanto a remodelação do cérebro adolescente quanto a maturação comportamental. Além disso, as mudanças fisiológicas e neurológicas provocadas pelos hormônios da puberdade levam a mudanças significativas na experiência de um indivíduo, que podem alterar profundamente o curso do desenvolvimento do cérebro. Assim, o aumento puberal dos hormônios esteróides sexuais, impulsionado pela maturação cronometrada do desenvolvimento do eixo neuroendócrino reprodutivo, por sua vez molda o desenvolvimento comportamental do adolescente por meio de influências diretas e indiretas no sistema nervoso.
A adolescência humana é agora reconhecida como um período importante e dinâmico de desenvolvimento neural durante o qual circuitos comportamentais são remodelados e refinados. Embora o cérebro de uma criança de 5 anos de idade já é 90% do seu tamanho adulto (Dekaban, 1978), a remodelação significativa ainda está por vir. Este conceito foi estimulado por pesquisas em humanos e animais documentando que muitos dos processos básicos de desenvolvimento que ocorrem durante o desenvolvimento perinatal do cérebro são recapitulados durante a adolescência. Esses processos incluem neurogênese (Eckenhoff e Rakic, 1988; Ele e as tripulações, 2007; Pinos, Collado, Rodriguez-Zafra, Rodriguez, Segóvia e Guillamon, 2001; Rankin, Partlow, McCurdy, Giles e Fisher, 2003), morte celular programada (Nunez, Lauschke e Juraska, 2001; Nunez, Sodhi e Juraska, 2002), elaboração e poda de arborizações e sinapses dendríticas (Andersen, Rutstein, Benzo, Hostetter e Teicher, 1997; Huttenlocher e Dabholkar, 1997; Lenroot e Giedd, 2006; Sowell, Thompson, Leonard, Bem-vindo, Kan e Toga, 2004), mielinização (Benes, Turtle, Khan e Farol, 1994; Paus, Collins, Evans, Leonard, Pike e Zijdenbos, 2001; Sowell, Thompson, Tessner e Toga, 2001) e diferenciação sexual (Chung, De Vries e Swaab, 2002; Davis, Shryne e Gorski, 1996; Nunez et al., 2001). Assim, a trajetória desenvolvimental do cérebro pós-natal não é linear, mas é caracterizada por uma explosão de mudanças rápidas na adolescência e envolve eventos progressivos e regressivos. Como qualquer biólogo do desenvolvimento sabe, períodos de rápida mudança no desenvolvimento sinalizam maior sensibilidade e vulnerabilidade tanto à mudança dependente da experiência quanto às conseqüências adversas da perturbação e do insulto, e não há razão para pensar que o desenvolvimento do cérebro humano adolescente seja uma exceção (Andersen, 2003; Lança, 2000). Assim, seria previsível que as perturbações no momento das influências do hormônio puberal no cérebro adolescente tivessem consequências duradouras para o comportamento adulto.
Andrógenos e circuitos neurais para comportamento motivado
Como a adolescência é uma fase de desenvolvimento transitória e dinâmica, seria difícil avaliar o cérebro e o comportamento do adolescente isoladamente. Em vez disso, para apreciar o caráter único da adolescência, é útil contrastá-lo com o cérebro e o comportamento de adultos maduros. Assim, com o foco deste artigo sobre o comportamento e recompensa sexual masculina, é importante introduzir os circuitos neurais para a cópula e a motivação sexual em homens adultos, incluindo o papel dos hormônios esteróides gonadais na ativação comportamental e na distribuição de receptores para andrógenos. (AR) e estrogênios (ER).
Os receptores de andrógenos (RA) estão presentes em grupos de células que formam os circuitos neurais que medeiam comportamentos sociais recompensadores, como o sexo. Além disso, os RA cerebrais são expressos antes da puberdade em hamsters e são regulados positivamente por andrógenos tanto em machos jovens quanto adultos ( Kashon, Hayes, Shek e Sisk, 1995 ; Meek, Romeo, Novak e Sisk, 1997 ). No cérebro de roedores, há uma sobreposição substancial na distribuição de RA e receptores de estrogênio (RE) ( Wood e Newman, 1995 ) e da aromatase ( Celotti, Negri-Cesi e Poletti, 1997 ), incluindo as formas α e β do receptor de estrogênio ( Shughrue, Lane e Merchenthaler, 1997 ). Ao se ligarem ao ligante, os RA e RE “clássicos” funcionam como fatores de transcrição para induzir a transcrição e a síntese de novas proteínas. Não surpreendentemente, esses efeitos seguem um curso temporal relativamente lento, com um início de ação tardio. A estimulação do comportamento sexual de hamsters machos por esteroides ( Noble e Alsum, 1975 ) é consistente com ações mediadas por mecanismos genômicos clássicos. Por exemplo, são necessárias duas semanas de exposição a esteroides para restaurar o acasalamento em animais castrados a longo prazo. Estudos mais recentes em ratos também demonstraram efeitos celulares rápidos de andrógenos em regiões cerebrais que possuem poucos receptores clássicos ( Mermelstein, Becker e Surmeier, 1996 ). Acredita-se que essas ações dos esteroides sejam mediadas por receptores não genômicos. Enquanto a distribuição dos receptores clássicos de andrógenos (AR) e de estrogênio (ER) no cérebro do hamster é relativamente restrita ( Wood e Swann, 1999 ), os potenciais alvos cerebrais para a ação não genômica dos andrógenos são muito mais amplos.
A área pré-óptica medial (MPOA) desempenha um papel central na cópula em machos, desde peixes dourados até humanos (revisado em Hull, Wood e McKenna, 2006 ). Além disso, a MPOA do hamster transduz hormônios esteroides gonadais por meio de abundantes receptores de andrógenos (AR) e de estrogênio (ER), e implantes de testosterona na MPOA são suficientes para restaurar a atividade sexual em animais castrados a longo prazo ( Wood e Swann, 1999 ). Em ratos machos, os esteroides gonadais atuam na MPOA para regular a liberação basal de dopamina (DA) ( Putnam, Sato e Hull, 2003 ) e estimular o acasalamento ( Hull, Du, Lorrain e Matuszewich, 1995 ). Inicialmente, há um aumento modesto na DA quando uma fêmea é apresentada atrás de uma tela. Durante a cópula, a DA na MPOA aumenta ainda mais (+50% do nível basal), e esse efeito requer andrógenos ( Hull et al., 1995 ; Putnam et al., 2003 ). Não surpreendentemente, em machos castrados que não acasalam, a DA na MPOA não aumenta ( Hull et al., 1995 ). É um tanto difícil interpretar esse resultado, uma vez que a ausência de liberação de DA é confundida pela falta de atividade sexual. No entanto, a liberação de DA na MPOA correlaciona-se com a perda do acasalamento em castrações de curto prazo ( Hull et al., 1995 ) e com a restauração da atividade sexual induzida pela testosterona em castrações de longo prazo ( Du, Lorrain e Hull, 1998 ; Putnam, Du, Sato e Hull, 2001 ).
Na área pré-óptica medial (MPOA) de roedores, os metabólitos androgênicos e estrogênicos da testosterona desempenham papéis específicos na regulação do acasalamento ( Putnam et al., 2003 ; Putnam, Sato, Riolo e Hull, 2005 ). A latência para iniciar a cópula (montar ou intrometer) é uma medida da motivação sexual. A latência para a atividade sexual é sensível aos estrogênios, por meio da manutenção da óxido nítrico sintase na MPOA, que, por sua vez, mantém os níveis basais de dopamina (DA). Animais castrados tratados com estrogênio apresentam altos níveis basais de DA, que se correlacionam fortemente com a capacidade de iniciar a cópula. No entanto, eles não apresentam aumentos na liberação de DA induzidos pela fêmea e pela cópula, que se correlacionam fortemente com o desempenho sexual. Consequentemente, seu desempenho sexual é inferior aos níveis observados em animais intactos. Por outro lado, animais castrados tratados apenas com androgênio não aromatizável não apresentam níveis basais elevados de DA e não conseguem iniciar a cópula. Portanto, para um desempenho sexual normal, tanto estrogênios quanto androgênios são necessários. O desempenho sexual geralmente é expresso por meio de medidas de frequência de montas, intromissões e ejaculações. Somente quando os níveis de estrogênio e androgênio são repostos, os machos castrados exibem níveis elevados de dopamina (e menor latência) e aumentos de dopamina induzidos pela fêmea e pela cópula (e aumento na frequência de montas). Dessa forma, os estrogênios na área pré-óptica medial (MPOA) contribuem para a motivação sexual, e tanto os estrogênios quanto os androgênios contribuem para o desempenho sexual.
Embora a testosterona seja necessária para a liberação de DA na área pré-óptica medial (MPOA) durante o comportamento copulatório masculino e para o próprio acasalamento, nem a testosterona nem o acasalamento isoladamente conseguem induzir a liberação de DA na MPOA. Em vez disso, sinais quimiossensoriais de fêmeas da mesma espécie também são necessários para a liberação de DA na MPOA. Em roedores, os estímulos quimiossensoriais são a principal modalidade sensorial para iniciar o comportamento sexual masculino ( Fig. 1 ). Os sinais quimiossensoriais são transmitidos dos bulbos olfatórios para a MPOA através do núcleo amigdaloide medial e do núcleo da estria terminal, estruturas com abundância de receptores de andrógeno (AR) e de estrogênio (ER) ( Wood e Swann, 1999 ). Para determinar o papel dos sinais quimiossensoriais na liberação de DA induzida pelo acasalamento, medimos a DA na MPOA durante o acasalamento em hamsters machos com gônadas intactas e submetidos à bulbectomia olfatória unilateral (UBx, Triemstra, Nagatani e Wood, 2005 ). Embora a remoção bilateral dos bulbos olfatórios elimine a atividade sexual e a liberação de DA na área pré-óptica medial (MPOA), a bulbectomia unilateral não interfere no acasalamento. Neste estudo, a cópula induziu a liberação de DA na MPOA quando medida contralateralmente ao bulbo olfatório lesionado, mas não no hemisfério ipsilateral ( Fig. 2 ). Resultados semelhantes foram observados em ratos machos com lesões na amígdala medial ( Dominguez, Riolo, Xu e Hull, 2001 ). Em um estudo relacionado, a estimulação química da amígdala medial em ratos induziu a liberação de DA na MPOA equivalente àquela observada durante a cópula ( Dominguez e Hull, 2001 ). Em conjunto, esses dados sugerem que a testosterona cria um ambiente permissivo que permite que estímulos sensoriais externos alcancem a MPOA e induzam a liberação de DA durante a cópula.

FIG. 2
Em última análise, o comportamento sexual e outras recompensas naturais ativam as vias neurais de recompensa. O circuito dopaminérgico mesocorticolímbico consiste na área tegmental ventral (ATV), no núcleo accumbens (Acb) e no córtex pré-frontal (CPF). Os corpos celulares dopaminérgicos residentes na ATV projetam-se rostralmente para o Acb e o CPF ( Koob e Nestler, 1997 ). Em ratos, a dopamina é liberada no Acb durante o sexo ( Pfaus, Damsma, Nomikos, Wenkstern, Blaha, Phillips e Fibiger, 1990 ). Muitas drogas de abuso também atuam no sistema dopaminérgico mesolímbico para aumentar a liberação de dopamina (anfetaminas) ou inibir a recaptação de dopamina (cocaína, Di Chiara e Imperato, 1988 ), reforçando assim suas propriedades viciantes. Dessa forma, a testosterona tem o potencial de afetar a liberação de dopamina no Acb tanto por meio do aumento do comportamento sexual quanto por meio de suas ações como droga de abuso (ver abaixo).
Evidências atuais sugerem que o sistema dopaminérgico mesocorticolímbico amadurece durante a adolescência. A densidade de fibras dopaminérgicas no núcleo accumbens (Acb) aumenta drasticamente durante a adolescência em gerbos, sugerindo que ocorre uma maturação significativa das projeções dopaminérgicas da área tegmental ventral (VTA) para o Acb durante esse período ( Lesting, Neddens e Teuchert-Noodt, 2005 ). Além disso, a entrada dopaminérgica em células GABAérgicas no córtex pré-frontal medial de ratos é enriquecida e modulada por sistemas serotoninérgicos durante o desenvolvimento puberal ( Benes, Taylor e Cunningham, 2000 ), e a manipulação de andrógenos em ratos adultos leva a alterações na densidade de axônios dopaminérgicos no córtex pré-frontal ( Kritzer, 2003 ). O córtex pré-frontal (Pfc), o Acb e a VTA possuem poucos receptores de andrógenos (AR) ou de estrogênios (ER), embora o ERβ esteja presente na VTA ( Shughrue et al., 1997 ). Portanto, parece provável que os andrógenos afetem o sistema DA mesocorticolímbico por meio de aferentes sensíveis a andrógenos ou por meio do ERβ na VTA, assim como no hipotálamo (Handa et al., neste número). Nossos dados mostram que células sensíveis a andrógenos em hamsters machos projetam-se para a VTA a partir de estruturas associadas a comportamentos sensíveis a esteroides. Por exemplo, tanto a área pré-óptica medial (MPOA) quanto o núcleo da estria terminal (BST) contêm um grande número de células AR-positivas que se projetam para a VTA ( Sato e Wood, 2006 ). O pálido ventral, o principal alvo eferente do núcleo accumbens ( Zahm e Heimer, 1990 ), também contém muitas células AR-positivas que se projetam para a VTA. Essas projeções proporcionam uma oportunidade para os andrógenos modificarem a atividade do sistema DA mesocorticolímbico.
Organização de comportamento dependente de esteróides durante a adolescência
A visão tradicional da ação hormonal no comportamento adolescente baseia-se nos efeitos ativacionais dos hormônios esteroides, que se referem à capacidade dos esteroides de facilitar o comportamento em contextos sociais específicos por meio da ação em células-alvo nos circuitos neurais subjacentes ao comportamento. Os efeitos ativacionais são transitórios, no sentido de que surgem e desaparecem com a presença e ausência do hormônio, e são tipicamente associados à expressão do comportamento adulto. Em contraste, os efeitos organizacionais referem-se à capacidade dos esteroides de moldar a estrutura do sistema nervoso durante o desenvolvimento. A organização estrutural é permanente, persiste além do período de exposição ao hormônio e determina as respostas neurais e comportamentais aos esteroides na idade adulta. Nossa compreensão da relação de desenvolvimento entre os efeitos organizacionais e ativacionais dos hormônios esteroides evoluiu ao longo dos últimos 50 anos. Phoenix e seus colegas propuseram inicialmente que as respostas comportamentais (ativacionais) adultas aos hormônios esteroides são programadas (organizadas) por esses hormônios durante um período de máxima sensibilidade do desenvolvimento perinatal ( Phoenix, Goy, Gerall e Young, 1959 ). Posteriormente, Scott e seus colegas estabeleceram as bases teóricas para a existência de múltiplos períodos sensíveis para a organização progressiva do sistema nervoso e observaram que esses períodos são mais propensos a ocorrer durante fases de rápida mudança no desenvolvimento (1974). Em seguida, Arnold e Breedlove apontaram que a organização cerebral dependente de esteroides pode ocorrer fora dos períodos sensíveis do desenvolvimento ( Arnold e Breedlove, 1985 ). Nos últimos 15 anos, pesquisas utilizando diversos modelos animais e sistemas comportamentais deixaram claro que o cérebro adolescente é sensível tanto aos efeitos ativacionais quanto aos efeitos organizacionais dos esteroides gonadais (revisado em Sisk e Zehr, 2005 ). E, assim como outros períodos de rápida mudança no desenvolvimento, a adolescência representa uma janela de oportunidade definida para a remodelação cerebral dependente de esteroides.
Nosso trabalho, utilizando o hamster como modelo animal, fornece evidências de que os comportamentos sociais masculinos são modificados por esteroides durante a adolescência ( Schulz, Menard, Smith, Albers e Sisk, 2006 ; Schulz e Sisk, 2006 ). Antes da puberdade, o tratamento com testosterona não consegue ativar o comportamento sexual em hamsters, sugerindo que os processos de maturação que tornam os circuitos neurais suscetíveis à ativação ou organização por hormônios esteroides ainda não ocorreram ( Meek et al., 1997 ; Romeo, Richardson e Sisk, 2002a ). Por outro lado, embora a expressão manifesta do comportamento reprodutivo masculino na idade adulta não exija necessariamente a presença de esteroides gonadais durante a adolescência, a expressão máxima desse comportamento exige. Comparando o comportamento reprodutivo masculino em machos castrados na pré-puberdade (NoT@P) ou na pós-puberdade (T@P) e posteriormente tratados com testosterona na idade adulta, os machos castrados na pré-puberdade (NoT@P) apresentam um déficit de pelo menos 50% no comportamento masculino em comparação com os machos castrados após a adolescência ( Fig. 3 , Schulz, Richardson, Zehr, Osetek, Menard e Sisk, 2004 ). Além disso, os déficits no comportamento reprodutivo são duradouros e não podem ser superados nem pelo tratamento prolongado com testosterona nem pela experiência sexual na idade adulta ( Schulz et al., 2004 ). Da mesma forma, após o tratamento com estrogênio e progesterona, os machos NoT@P exibem latências de lordose mais curtas e durações de lordose mais longas do que os machos castrados na idade adulta ( Schulz et al., 2004 ), sugerindo que os machos castrados na pré-puberdade são menos desfeminizados do que os machos expostos à testosterona na puberdade.

FIG. 3
É possível que os machos NoT@P sofram de diminuição da motivação sexual. Uma maneira de abordar essa questão é comparar a latência para o início da investigação anogenital (IAG) e da monta entre machos gonadectomizados antes (NoT@P) e depois da puberdade (T@P). Se a motivação sexual depende da exposição aos hormônios gonadais durante a adolescência, preveríamos latências maiores para o início do comportamento sexual em machos NoT@P. De fato, com a exposição repetida a fêmeas no cio, os machos NoT@P levam mais tempo para iniciar a IAG e a monta em comparação com os machos T@P ( Fig. 4 ). Assim, além de organizar aspectos do desempenho sexual, parece que os hormônios puberais também organizam os aspectos recompensadores do comportamento sexual. Em apoio a essa possibilidade, a administração central do agonista da dopamina apomorfina na idade adulta restaura o comportamento de monta dos machos NoT@P aos níveis típicos de adultos, sugerindo que a testosterona durante a adolescência organiza normalmente os circuitos neurais dopaminérgicos (Salas-Ramirez, Montalto e Sisk, 2006). Contudo, muitas questões interessantes permanecem. Um macho NoT@P apresentaria comportamento de "barpress" (pressão de barra) para atrair uma fêmea no cio ou desenvolveria uma preferência condicionada por um local de acasalamento? Pesquisas futuras explorarão o papel dos hormônios da puberdade na organização da motivação e do desempenho sexual.

FIG. 4
Latências e durações da investigação anogenital (IAG) exibidas por hamsters machos gonadectomizados antes da puberdade (NoT@P) ou após a puberdade (T@P). Todos os machos foram tratados com testosterona na idade adulta, 7 semanas após a gonadectomia e uma semana antes do primeiro teste comportamental. A. Os machos T@P apresentaram latências de IAG semelhantes nos três testes com uma fêmea no cio, enquanto os machos NoT@P apresentaram aumento nas latências de IAG durante o terceiro teste com uma fêmea no cio. B. Os machos T@P apresentaram diminuição nas latências de monta nos três testes comportamentais com uma fêmea no cio, enquanto os machos NoT@P não apresentaram alteração na latência de monta nos três testes comportamentais. Esses dados sugerem que os hormônios gonadais da puberdade têm efeitos facilitadores duradouros na motivação de machos adultos para se envolverem em comportamento sexual com uma fêmea. (Dados não publicados de sujeitos animais em Schulz, KM, Richardson, HN, Zehr, JL, Osetek, AJ, Menard, TA e Sisk, CL, 2004 ).
Respostas comportamentais pré-púberes aos esteróides
Um dos enigmas persistentes do desenvolvimento comportamental na adolescência é por que a ativação do comportamento reprodutivo em resposta à exposição a esteroides é atenuada em hamsters machos pré-púberes. Se baixos níveis de andrógenos antes da puberdade limitam a expressão do comportamento sexual masculino em machos pré-púberes, então a suplementação de andrógenos endógenos em machos pré-púberes deveria induzir o acasalamento. No entanto, isso não se verifica ( Meek et al., 1997 ; Romeo, Cook-Wiens, Richardson e Sisk, 2001 ; Romeo, Wagner, Jansen, Diedrich e Sisk, 2002b ), apesar de o número e a distribuição de receptores de andrógenos (AR) e de estrogênio (ER) ao longo do circuito de acasalamento serem semelhantes em machos castrados pré-púberes e adultos tratados com hormônios ( Meek et al., 1997 ; Romeo, Diedrich e Sisk, 1999 ; Romeo et al., 2002a ). Portanto, parece que os andrógenos e o receptor de andrógenos são necessários, mas não suficientes para a expressão do comportamento sexual masculino.
Os esforços para identificar os fatores que limitam a atividade sexual antes da puberdade têm apresentado resultados mistos até o momento. As respostas de Fos a sinais quimiossensoriais de fêmeas no cio são semelhantes em hamsters machos pré-púberes e adultos ( Romeo, Parfitt, Richardson e Sisk, 1998 ). Esses dados demonstram que os mecanismos de transdução sensorial estão maduros antes da puberdade. Assim, machos jovens são capazes de detectar sinais quimiossensoriais de fêmeas; a diferença em relação aos adultos reside na forma como respondem a esses sinais. Uma possível explicação é que machos pré-púberes não são motivados a se envolver em comportamento sexual. Descobrimos que hamsters machos pré-púberes não apresentam aumento nas respostas dopaminérgicas na área pré-óptica medial (MPOA) em resposta a feromônios femininos, enquanto machos adultos sexualmente inexperientes apresentam respostas dopaminérgicas robustas na MPOA aos mesmos estímulos ( Fig. 5 , Schulz, Richardson, Romeo, Morris, Lookingland e Sisk, 2003 ). De forma semelhante, machos pré-púberes não apresentam o aumento típico de testosterona circulante observado em adultos após a exposição a feromônios femininos ( Parfitt, Thompson, Richardson, Romeo e Sisk, 1999 ). Assim, os feromônios femininos parecem ser um estímulo incondicionado para respostas neuroquímicas e neuroendócrinas em machos adultos, mas não em machos pré-púberes, sugerindo que a saliência desses estímulos sensoriais socialmente relevantes se altera ao longo do desenvolvimento puberal, possivelmente relacionada à aquisição de propriedades recompensadoras e à motivação sexual. Além disso, embora a testosterona facilite a interação sexual com uma fêmea em machos pré-púberes, esse efeito depende de o macho ter ou não tido contato prévio com uma fêmea no cio. Surpreendentemente, o tratamento com testosterona diminui a latência e aumenta a duração da interação sexual apenas em machos pré-púberes sexualmente inexperientes ( Fig. 6 ). Além disso, machos pré-púberes que já tiveram uma experiência anterior com uma fêmea apresentam latências de AGI muito mais longas e durações de AGI mais curtas do que machos que interagem com fêmeas receptivas pela primeira vez ( Fig. 6 ). Esses dados sugerem que as interações com uma fêmea no cio são aversivas, e não recompensadoras, antes da puberdade, eliminando assim quaisquer efeitos facilitadores da testosterona sobre o AGI durante interações subsequentes com uma fêmea. Seria interessante saber se as consequências comportamentais negativas da exposição precoce a uma fêmea no cio persistem na adolescência e na idade adulta, especialmente considerando que a exposição repetida a fêmeas no cio durante a adolescência geralmente facilita a expressão do comportamento reprodutivo masculino ( Molenda-Figueira, Salas-Ramirez, Schulz, Zehr, Montalto e Sisk, 2007 ).

FIG. 5
Respostas dopaminérgicas da área pré-óptica medial (MPOA) de machos pré-púberes e adultos a feromônios femininos contidos em secreções vaginais. Machos adultos apresentam aumento na atividade dopaminérgica da MPOA com a exposição a secreções vaginais femininas, enquanto machos pré-púberes não apresentam aumento nas respostas dopaminérgicas da MPOA a feromônios femininos. (Adaptado de Schulz, KM, Richardson, HN, Romeo, RD, Morris, JA, Lookingland, KJ, e Sisk, CL, 2003 ).

Embora o tratamento com andrógenos na pré-puberdade não induza a cópula, trabalhos recentes do nosso laboratório sugerem que o sistema nervoso do hamster é sensível à ação organizadora da testosterona sobre o comportamento reprodutivo antes da adolescência ( Schulz, Zehr, Salas-Ramirez e Sisk, 2007 ). A castração, seguida de 19 dias de exposição à testosterona antes ou durante a adolescência, mas não após, facilitou o comportamento de monta quando a testosterona foi reposta na idade adulta. Machos expostos à testosterona na pré-puberdade também apresentaram mais intromissões na idade adulta do que machos expostos à testosterona durante ou após a puberdade ( Schulz et al., 2007 ). Esses dados sugerem que a capacidade da testosterona de organizar circuitos neurais comportamentais diminui com a idade e que a adolescência marca o fim de um longo período pós-natal de sensibilidade à exposição à testosterona.
Andrógenos farmacológicos
Os dados anteriores sugerem que os esteroides gonadais endógenos aumentam os comportamentos motivados durante a adolescência. Agora, o que acontece se alguém se autoadministrar andrógenos em níveis até 100 vezes superiores às concentrações fisiológicas normais? Este é o problema do abuso de esteroides anabolizantes androgênicos (EAA) (revisado em Brower, 2002 ; Clark e Henderson, 2003 ). Uma breve digressão é apropriada aqui: todos os EAA são derivados da testosterona, todos os EAA possuem um esqueleto de carbono com 4 anéis fundidos, a maioria com 19 carbonos. Os EAA são usados principalmente por seus efeitos anabólicos (de construção muscular). No entanto, como o próprio nome indica, os EAA também possuem propriedades androgênicas. A testosterona é uma escolha lógica em estudos com animais para explorar os mecanismos fundamentais da recompensa androgênica. Ela continua sendo uma escolha popular também para usuários humanos, geralmente na forma de ésteres de testosterona de longa duração, como o propionato de testosterona. Em 2006, a testosterona foi a substância proibida mais comumente detectada em exames de urina em laboratórios credenciados pela WADA ( WADA, 2006 ). A testosterona representou a maior fração (34%) dos exames de urina positivos para esteroides anabolizantes androgênicos (EAA) nos Jogos Olímpicos de Sydney de 2000 ( Van Eenoo e Delbeke, 2003 ). Da mesma forma, em exames de urina de usuários de EAA, 41% apresentaram resultado positivo para testosterona ( Brower, Catlin, Blow, Eliopulos e Beresford, 1991 ). Em altas doses, os EAA produzem alterações comportamentais significativas. Em particular, devido à sua estreita relação com a testosterona, o uso de EAA na adolescência parece perturbar o ambiente esteroidal normal do sistema nervoso em desenvolvimento do adolescente, incluindo a quantidade, o momento e o tipo de exposição aos esteroides.
Assim como ocorre com outras drogas ilícitas, o abuso de esteroides anabolizantes androgênicos (EAA) em humanos é um problema da adolescência. De acordo com a Pesquisa Nacional sobre o Uso de Drogas em Domicílios de 1994 ( SAMHSA/OAS, 1996 ), o uso de esteroides atinge o pico no final da adolescência, aos 18 anos de idade. Além disso, na pesquisa Monitoring the Future ( Johnston, O'Malley e Bachman, 2003 ), a incidência de uso de esteroides ao longo da vida entre alunos do último ano do ensino médio (2.7%) foi comparável à do crack (3.5%) ou da heroína (1.4%). O uso de esteroides também é cada vez mais comum em idades mais jovens: 2.5% dos alunos da 8ª série (13-14 anos) já usaram esteroides, similar à incidência de uso de crack (2.5%) e heroína (1.6%). Essa tendência ao uso de esteroides anabolizantes androgênicos (EAA) no início da adolescência é particularmente preocupante, considerando os seguintes pontos: 1) a vulnerabilidade dos adolescentes ao abuso de EAA e 2) o potencial da exposição a EAA em níveis farmacológicos na adolescência para alterar substancialmente a maturação normal do cérebro e do comportamento, produzindo respostas morfológicas e comportamentais exageradas, tanto agudas quanto crônicas.
A agressão inadequada é a resposta comportamental mais frequentemente associada ao abuso de EAA em humanos. Em relatos de casos publicados, o uso de esteróides tem sido implicado em vários assassinatos violentos (Conacher e Workman, 1989; Papa e Katz, 1990; Pope, Kouri, Powell, Campbell e Katz, 1996; Schulte, Hall e Boyer, 1993). Em pesquisas com usuários atuais de EAA, agressividade e irritabilidade elevadas foram os efeitos colaterais comportamentais mais comuns do uso de EAA (Bond, Choi e Pope, 1995; Galligani, Renck e Hansen, 1996; Midgley, Heather e Davies, 2001; Parrott, Choi e Davies, 1994; Perry, Kutscher, Lund, Yates, Holman e Demers, 2003). No entanto, dada a variedade de exposições androgênicas, a variedade de sintomas psiquiátricos e o potencial de disfunção psiquiátrica pré-existente, é difícil determinar o papel preciso dos EAA nesses casos de agressão humana. Os resultados de estudos prospectivos de voluntários humanos recebendo injeções de AAS foram misturados: Tricker e outros (1996) e O'Connor et al (2004) relataram nenhum aumento no comportamento de raiva, enquanto outros estudos observaram aumento da agressão (Daly, Su, Schmidt, Pickar, Murphy e Rubinow, 2001; Hannan, Friedl, Zold, Kettler e Plymate, 1991; Kouri, Lukas, Pope e Oliva, 1995; Papa e Katz, 1994; Su, Pagliaro, Schmidt, Pickar, Wolkowitz e Rubinow, 1993). No entanto, é importante ter em mente que as doses administradas a voluntários humanos são muito menores do que as doses preconizadas em sites de musculação, e a duração do tratamento é geralmente curta. Assim, no final, parece justo concluir que os EAAs têm o potencial de melhorar o comportamento agonístico, pelo menos em indivíduos suscetíveis. Pope et al (1994) descobriram que os EAA provocam sintomas psiquiátricos em indivíduos vulneráveis.
Estudos em animais também forneceram evidências convincentes da agressividade induzida por esteroides anabolizantes androgênicos (EAA). Hamsters machos adolescentes tratados cronicamente com altas doses de esteroides apresentam menor latência de ataque e maior número de ataques e mordidas contra um intruso macho em comparação com machos não tratados ( Harrison, Connor, Nowak, Nash e Melloni, 2000 ; Melloni, Connor, Hang, Harrison e Ferris, 1997 ). Da mesma forma, uma leve provocação (beliscão na cauda) produz um aumento persistente na agressividade em ratos machos adolescentes, incluindo agressividade contra fêmeas ( Cunningham e McGinnis, 2006 ). Ainda mais preocupante, a exposição de hamsters adolescentes a EAA causa aumentos duradouros no comportamento agonístico que persistem mesmo após a interrupção do uso de esteroides ( Grimes e Melloni, 2006 ). Essas alterações comportamentais são acompanhadas por uma remodelação duradoura dos circuitos neurais no hipotálamo anterior. Em particular, a exposição a esteroides anabolizantes androgênicos (EAA) em hamsters adolescentes aumenta a vasopressina arginina (AVP, Grimes e Melloni, 2006 ) e reduz a serotonina e os receptores serotoninérgicos 5HT1A e 5HT1B ( Ricci, Rasakham, Grimes e Melloni, 2006 ). Não é de surpreender que os EAA também alterem os níveis cerebrais do receptor de andrógeno (RA). A exposição crônica à testosterona ou à nandrolona aumenta a expressão do RA nuclear em ratos machos ( Menard e Harlan, 1993 ; Wesson e McGinnis, 2006 ). Assim, existe o potencial dos EAA para intensificar comportamentos dependentes de andrógenos, tanto pela suplementação de andrógenos endógenos quanto pelo aumento da responsividade androgênica por meio do aumento da expressão do RA.
Em comparação com o comportamento agonístico, os esteroides anabolizantes androgênicos (EAA) têm um efeito menos acentuado no comportamento de acasalamento em roedores machos, e a resposta depende do esteroide específico utilizado (revisado em Clark e Henderson, 2003 ). Em hamsters machos que consumiram testosterona em soluções orais, as ejaculações aumentaram de forma dose-dependente (Wood, 2002). No entanto, nem a testosterona nem a nandrolona aumentaram o acasalamento em ratos machos adolescentes. O estanozolol, um EAA relativamente menos potente com atividade androgênica mínima, na verdade inibiu tanto o acasalamento quanto a agressão (Farrell e McGinnis, 2003), presumivelmente por reduzir os níveis endógenos de andrógenos.
É particularmente importante notar que hamsters adolescentes e adultos podem apresentar respostas comportamentais diferentes à exposição a esteroides anabolizantes androgênicos (EAA). Enquanto os EAA aumentaram acentuadamente o comportamento agonístico em machos adolescentes, o mesmo tratamento na idade adulta produziu apenas um aumento modesto no comportamento agressivo e diminuiu significativamente o comportamento sexual ( Salas-Ramirez, Montaldo e Sisk, 2008 ). Isso está de acordo com o conceito da adolescência como um período sensível à ação dos andrógenos. Além disso, assim como hamsters machos adultos adquirem tolerância à testosterona exógena ( Peters e Wood, 2005 ), acreditamos que machos em desenvolvimento adquirem tolerância à testosterona à medida que amadurecem. Portanto, os efeitos dos EAA se modificam ao longo do desenvolvimento adolescente, e a exposição a EAA na adolescência pode causar padrões excessivos de comportamento agressivo e sexual que podem persistir na idade adulta.
Reforçar os efeitos dos andrógenos
O acasalamento e a luta são recompensadores (pelo menos se você vencer a luta). Ratos machos pressionam uma alavanca repetidamente para copular com uma fêmea ( Everitt e Stacey, 1987 ). Da mesma forma, camundongos machos e hamsters fêmeas desenvolvem uma preferência condicionada por local (PCL) por locais onde venceram lutas anteriormente ( Martinez, Guillen-Salazar, Salvador e Simon, 1995 ; Meisel e Joppa, 1994 ). Se os esteroides anabolizantes androgênicos (EAA) podem aumentar comportamentos sociais recompensadores acima dos níveis normalmente observados em machos com gônadas intactas, é lógico esperar que a própria testosterona possa ser recompensadora. Isso foi testado usando dois modelos animais bem estabelecidos para recompensa e reforço: PCL e autoadministração. Os resultados desses estudos demonstram que a testosterona é reforçadora em um contexto experimental onde os efeitos anabólicos e o desempenho atlético são irrelevantes. Na PCL, a substância de teste é repetidamente associada a um ambiente único (por exemplo, uma câmara específica no aparato de teste). Uma vez que o animal associa a substância de teste reforçadora com aquele ambiente, ele buscará o ambiente mesmo na ausência de recompensa. Os primeiros relatos de recompensa androgênica em animais de laboratório utilizaram injeções sistêmicas de testosterona para induzir CPP em camundongos machos ( Arnedo, Salvador, Martinez-Sanchis e Gonzalez-Bono, 2000 ; Arnedo, Salvador, Martinez-Sanchis e Pellicer, 2002 ) e ratos ( Alexander, Packard e Hines, 1994 ; de Beun, Jansen, Slangen e Van de Poll, 1992 ). Posteriormente, nosso laboratório utilizou a autoadministração de testosterona para demonstrar o reforço androgênico ( Johnson e Wood, 2001 ). Descobrimos que hamsters machos consomem voluntariamente soluções orais de testosterona, tanto em testes de escolha entre duas garrafas quanto em testes de ingestão de água induzida por alimento. Em estudos posteriores, demonstramos a autoadministração intravenosa em ratos e hamsters machos ( Wood, Johnson, Chu, Schad e Self, 2004 ). A administração intravenosa elimina os potenciais efeitos de confusão do paladar ou do conteúdo intestinal na ingestão de andrógenos.
No contexto do abuso de esteroides anabolizantes androgênicos (EAA), é importante diferenciar entre os efeitos centrais e periféricos dos andrógenos. Como a testosterona tem efeitos generalizados em todo o corpo, pode-se argumentar que a recompensa e o reforço com injeções sistêmicas de testosterona são secundários às ações anabólicas e androgênicas sistêmicas da testosterona. Em outras palavras, talvez a testosterona reduza a fadiga muscular e melhore a função articular, fazendo com que os animais simplesmente se sintam melhor. De fato, essa explicação tem sido usada na literatura clínica (embora sem evidências experimentais) para argumentar contra o potencial de dependência e vício em EAA ( DiPasquale, 1998 ). No entanto, Packard et al. ( Packard, Cornell e Alexander, 1997 ) mostraram que injeções de testosterona diretamente no cérebro de ratos podem induzir preferência condicionada por lugar (CPP). Da mesma forma, nosso laboratório demonstrou a autoadministração intracerebroventricular (icv) de testosterona em hamsters machos ( Wood et al., 2004 ). A CPP intracerebral e a autoadministração icv de testosterona sugerem alvos centrais mediando o reforço androgênico.
É importante notar que o reforço da testosterona não segue necessariamente os mesmos mecanismos previamente estabelecidos para os efeitos dos esteroides no comportamento sexual. Como discutido anteriormente, a área pré-óptica medial (MPOA) é um local chave para a organização do comportamento sexual em roedores machos ( Hull, Meisel e Sachs, 2002 ). Em hamsters, a MPOA possui abundantes receptores de esteroides, e implantes de testosterona na MPOA restauram a atividade sexual em animais castrados a longo prazo ( Wood e Swann, 1999 ). A evolução temporal desses efeitos dos esteroides é lenta: o comportamento de monta persiste por semanas após a orquiectomia, e a exposição prolongada a esteroides é necessária para restaurar o acasalamento em animais castrados a longo prazo ( Noble e Alsum, 1975 ). No entanto, injeções de testosterona na MPOA de ratos machos não induzem preferência condicionada por lugar (CPP) ( King, Packard e Alexander, 1999 ). Isso sugere que outras regiões cerebrais são importantes para o reforço androgênico.
Em contraste, ratos machos desenvolvem uma preferência condicionada por lugar (CPP) em resposta a injeções de testosterona no núcleo accumbens (Acb) ( Packard et al., 1997 ). Assim como ocorre com outras drogas de abuso, a dopamina (DA) provavelmente é um neurotransmissor chave para o reforço da testosterona: a CPP induzida por injeção sistêmica de testosterona é bloqueada por antagonistas dos receptores de dopamina D1 e D2 ( Schroeder e Packard, 2000 ). No entanto, diferentemente de outras drogas de abuso, nossos estudos em hamsters sugerem que a testosterona não induz a liberação de DA no Acb ( Triemstra, Sato e Wood, no prelo ). Da mesma forma, estudos com ratos machos mostram que os andrógenos não têm efeito sobre os níveis basais de DA ou sobre a liberação de DA estimulada por anfetamina ( Birgner, Kindlundh-Hogberg, Nyberg e Bergstrom, 2006 ; mas veja também Clark, Lindenfeld e Gibbons, 1996 ). Além disso, a testosterona exerce uma influência relativamente pequena nos níveis de DA no tecido do Acb ( Thiblin, Finn, Ross e Stenfors, 1999 ). Em conjunto, esses dados sugerem que, embora o reforço da testosterona possa, em última análise, alterar a atividade da DA no Acb, os mecanismos podem ser distintos daqueles da cocaína ou de outros estimulantes. Nesse sentido, dados recentes sugerem que a exposição crônica a EAA pode alterar a sensibilidade à DA, alterando o metabolismo da DA ( Kurling, Kankaanpaa, Ellermaa, Karila e Seppala, 2005 ), os níveis de receptores de DA ( Kindlundh, Lindblom, Bergstrom, Wikberg e Nyberg, 2001 ; Kindlundh, Lindblom e Nyberg, 2003 ) ou o transportador de DA ( Kindlundh, Bergstrom, Monazzam, Hallberg, Blomqvist, Langstrom e Nyberg, 2002 ).
Atualmente, os sinais esteroidais específicos, os receptores e os locais de ação cerebral responsáveis pelo reforço da testosterona são desconhecidos. Com base em um estudo recente com hamsters realizado em nosso laboratório, os efeitos reforçadores da testosterona parecem ser mediados tanto por andrógenos quanto por estrogênios ( DiMeo e Wood, 2006 ). Os esteroides anabolizantes androgênicos (EAA) comumente utilizados de forma abusiva incluem andrógenos aromatizáveis e não aromatizáveis ( Gallaway, 1997 ; WADA, 2006 ). Isso implica que tanto os receptores de andrógenos (RA) quanto os de estrogênio (RE) podem transduzir estímulos esteroidais para recompensa. Existe ainda a possibilidade de que o reforço da testosterona seja mediado por uma combinação de receptores clássicos e não genômicos.
Diversas evidências apontam para a ação de receptores não genômicos nos efeitos reforçadores dos EAA. Além da distribuição esparsa de AR no Acb e VTA, o curso temporal do reforço androgênico é rápido (<30 min), e o processamento do sinal através do AR clássico pode não ser rápido o suficiente para o reforço. Consequentemente, para testar o papel do AR não genômico no reforço dos EAA, utilizamos duas técnicas complementares ( Fig. 7 ). Em um experimento ( Sato, Johansen, Jordan e Wood, 2006 ), permitimos que ratos com a mutação de feminização testicular (Tfm, veja esta edição) se autoadministrassem diidrotestosterona (DHT), um andrógeno não aromatizável. A mutação Tfm diminui consideravelmente a ligação do ligante ao AR. Mesmo assim, ratos Tfm e seus irmãos machos selvagens se autoadministraram quantidades aproximadamente iguais de DHT. Isso indica a existência de efeitos não genômicos da DHT. Em um estudo subsequente, determinamos se hamsters machos se autoadministrariam DHT conjugado à albumina sérica bovina (BSA, Fig. 8 , Sato e Wood, 2007 ). Os conjugados DHT-BSA são impermeáveis à membrana; portanto, seus efeitos são limitados à superfície celular. Os hamsters se autoadministraram DHT, como demonstrado anteriormente ( DiMeo e Wood, 2006 ). Eles mostraram uma preferência semelhante por conjugados DHT-BSA, mas não se autoadministraram BSA isoladamente.

FIG. 7

Esses dados apontam para um papel central dos receptores de andrógenos (RAs) da superfície celular no reforço androgênico. Atualmente, a natureza exata desses receptores é desconhecida. Sugere-se que os andrógenos possam agir na superfície celular por meio da ligação a RAs de membrana específicos ( Thomas, Dressing, Pang, Berg, Tubbs, Benninghoff e Doughty, 2006 ; veja também esta edição). Isso pode ocorrer na forma de RAs clássicos extranucleares, como relatado no hipocampo (Sarkey et al., nesta edição). Alternativamente, estudos anteriores também descreveram sítios de ligação de esteroides em outros sistemas de neurotransmissores. Especificamente, uma variedade de hormônios esteroides, incluindo esteroides anabolizantes androgênicos (EAA), pode modular alostericamente o receptor GABA-A ( Henderson, 2007 ; Lambert, Belelli, Peden, Vardy e Peters, 2003 ). Da mesma forma, os neuroesteroides sulfatados podem modificar a atividade de subtipos de receptores N -metil- D -aspartato (NMDA) ( Malayev, Gibbs e Farb, 2002 ). Esta é uma área importante para pesquisas futuras.
Por que deveria haver uma membrana AR? Como discutido anteriormente, existe uma estreita associação entre a secreção de andrógenos e recompensar os comportamentos sociais. Podemos especular que o aumento na secreção de testosterona que segue o acasalamento ou a luta serve para reforçar o comportamento. Se assim for, é necessário ter um rápido acoplamento de estímulo (comportamento) e recompensa (testosterona). Isto pode ser melhor conseguido através da ligação à membrana AR. A este respeito, seria interessante determinar se o clampeamento da secreção de andrógenos durante o acasalamento reduz os efeitos recompensadores do comportamento sexual.
Resumo
Aqui revisamos as evidências de que os andrógenos são mediadores potentes de comportamentos adultos motivados e, além disso, que o momento da exposição ao androgênio durante os programas de desenvolvimento motivou o comportamento dependente de andrógenos na vida adulta. Os esteróides anabolizantes estão rapidamente se tornando uma droga favorita de abuso por adolescentes nos EUA. Embora o AAS possa não ter a potência viciante da cocaína ou da heroína, estamos apenas começando a entender o potencial de reforço e dependência de andrógenos. Em particular, à medida que os esportes juvenis se tornam mais competitivos, há uma crescente pressão no desenvolvimento de atletas para o uso de esteróides, começando em idades mais jovens. Essa tendência é preocupante em vista de novas evidências de maturação neural sensível a esteróides em adolescentes.
Apesar da crescente conscientização, tanto do público em geral quanto da comunidade científica, sobre as profundas mudanças neurais que acompanham a adolescência, o estudo experimental da neurobiologia do desenvolvimento da puberdade tem sido limitado. Modelos animais do desenvolvimento adolescente são necessários para investigar como o momento da exposição hormonal durante o desenvolvimento aumenta o risco de psicopatologia e uso de drogas em um indivíduo, e quais tipos de experiências atenuam ou amplificam os efeitos comportamentais de desvios no momento da puberdade. Por exemplo, fatores sociais como a influência dos pares exacerbam os efeitos do momento da puberdade no uso de substâncias e álcool ( Biehl, Natsuaki e Ge, 2007 ; Patton, Novy, Lee e Hickok, 2004 ; Simons-Morton e Haynie, 2003 ; Wichstrom e Pedersen, 2001 ). Modelos animais do momento da puberdade também contribuirão para pesquisas em humanos e poderão levar a intervenções terapêuticas mais eficazes durante a adolescência.
Agradecimentos
Agradecemos a Eleni Antzoulatos, a Cortney Ballard, a Lucy Chu, a Kelly Peters, a Jennifer Triemstra, a Jane Venier, a Lisa Rogers e a Pamela Montalto pela assistência nesses estudos. Este trabalho apoiado por subvenções do NIH (DA12843 para RIW, MH68764 para CLS e MH070125 para KMS).
Notas de rodapé
Aviso do Editor: Este é um arquivo PDF de um manuscrito não editado que foi aceito para publicação. Como um serviço aos nossos clientes, estamos disponibilizando esta versão preliminar do manuscrito. O manuscrito passará por revisão ortográfica e gramatical, formatação e revisão da prova resultante antes de ser publicado em sua forma final e citável. Observe que, durante o processo de produção, erros podem ser descobertos, o que pode afetar o conteúdo, e todas as isenções de responsabilidade legais aplicáveis à revista permanecem válidas.
Referências
- Alexander GM, Packard MG e Hines M. Testosterone têm propriedades afetivas recompensadoras em ratos machos: implicações para a base biológica da motivação sexual. Neurociência Comportamental. 1994;108: 424 – 8. [PubMed]
- Andersen SL. Trajetórias do desenvolvimento do cérebro: ponto de vulnerabilidade ou janela de oportunidade? Neuroscience & Biobehavioral Reviews. 2003;27: 3 – 18. [PubMed]
- Andersen SL, Rutstein M. Benzo JM, Hostetter JC, Teicher MH. Diferenças sexuais na superprodução e eliminação de receptores de dopamina. Neuroreport. 1997;8: 1495 – 8. [PubMed]
- Arnedo MT, Salvador A, Martinez-Sanchis S, Gonzalez-Bono E. Propriedades recompensadoras de testosterona em camundongos machos intactos: um estudo piloto. Pharmacology, Biochemistry & Behavior. 2000;65: 327 – 32.
- Arnedo MT, Salvador A, Martinez-Sanchis S, Pellicer O. Efeitos semelhantes de recompensa da testosterona em camundongos classificados como indivíduos de latência de ataque de curta e longa duração. Biologia do Vício. 2002;7: 373 – 9. [PubMed]
- Arnold AP, Breedlove SM. Efeitos organizacionais e ativadores de esteróides sexuais no cérebro e comportamento: uma reanálise. Hormônios e comportamento. 1985;19: 469 – 98. [PubMed]
- Benes FM, Taylor JB, Cunningham MC. Convergência e plasticidade de sistemas monoaminérgicos no córtex pré-frontal medial durante o período pós-natal: implicações para o desenvolvimento da psicopatologia. Córtex cerebral. 2000;10: 1014 – 27. [PubMed]
- Benes FM, Tartaruga M, Khan Y, Farol P. Mielinização de uma zona chave de revezamento na formação do hipocampo ocorre no cérebro humano durante a infância, adolescência e idade adulta. Arquivos da psiquiatria geral. 1994;51: 477 – 84. [PubMed]
- Biehl MC, Natsuaki MN, Ge XJ. A influência do tempo puberal sobre o uso de álcool e trajetórias de consumo pesado. Jornal da Juventude e Adolescência. 2007;36: 153 – 167.
- Birgner C, Kindlundh-Hogberg AM, Nyberg F., Bergstrom L. Cartas de neurociência. 2006. Níveis extracelulares alterados de DOPAC e HVA na casca do núcleo accumbens de rato em resposta à administração sub-crónica de nandrolona e um subsequente desafio com anfetamina.
- Bond AJ, Choi PY, Papa HG, Jr. Avaliação do viés de atenção e humor em usuários e não usuários de esteróides anabólicos androgênicos. Dependência de drogas e álcool. 1995;37: 241 – 5. [PubMed]
- Brower KJ. Abuso e dependência de esteróides anabolizantes. Relatórios atuais de psiquiatria. 2002;4: 377 – 87. [PubMed]
- Brower KJ, Catlin DH, Sopro FC, Eliopulos GA, Beresford TP. Avaliação clínica e testes de urina para abuso e dependência de esteróides anabólicos androgênicos. American Journal of Drug & Alcohol Abuse. 1991;17: 161 – 171. [PubMed]
- Celotti F, Negri-Cesi P, Poletti A. Metabolismo de esteróides no cérebro de mamíferos: 5alfa-redução e aromatização. Boletim de Pesquisa do Cérebro. 1997;44: 365 – 75. [PubMed]
- Chung WC, De Vries GJ e Swaab DF. A diferenciação sexual do núcleo do leito da estria terminal em humanos pode se estender até a idade adulta. Journal of Neuroscience. 2002;22: 1027 – 33. [PubMed]
- Clark AS, Henderson LP. Respostas comportamentais e fisiológicas aos anabólicos esteróides androgênicos. Neuroscience & Biobehavioral Reviews. 2003;27: 413 – 36. [PubMed]
- Clark AS, Lindenfeld RC, Gibbons CH. Esteróides androgênicos anabólicos e recompensa cerebral. Pharmacology, Biochemistry & Behavior. 1996;53: 741 – 5.
- GN Conacher, DG Workman. Crime violento possivelmente associado ao uso de esteróides anabolizantes. Jornal americano da psiquiatria. 1989;146: 679. [PubMed]
- Cunningham RL, McGinnis meu. A provocação física de ratos machos expostos a esteróides androgênicos anabolizantes pubertais provoca agressividade para as fêmeas. Hormônios e comportamento. 2006;50: 410 – 6. [PubMed]
- Daly RC, Su TP, Schmidt PJ, Pickar D, Murphy DL, Rubinow DR. Alterações no líquido cefalorraquidiano e no comportamento após administração de metiltestosterona: achados preliminares. Arquivos da psiquiatria geral. 2001;58: 172 – 7. [PubMed]
- Davis EC, Shryne JE, Gorski RA. Os dimorfismos sexuais estruturais no núcleo periventricular ântero-ventral do hipotálamo de rato são sensíveis aos esteróides gonadais por via perinatal, mas se desenvolvem peripubertalmente. Neuroendocrinologia. 1996;63: 142 – 8. [PubMed]
- de Beun R, Jansen E, JL Slangen, NE de Van de Poll. Testosterona como estímulo apetitivo e discriminativo em ratos: efeitos dependentes de sexo e dose. Fisiologia e comportamento. 1992;52: 629 – 34. [PubMed]
- Dekaban AS. Alterações nos pesos cerebrais durante o período da vida humana: relação dos pesos cerebrais com as alturas do corpo e os pesos corporais. Anais de Neurologia. 1978;4: 345 – 56. [PubMed]
- Di Chiara G, Imperato A. Drogas abusadas por seres humanos aumentam preferencialmente as concentrações sinápticas de dopamina no sistema mesolímbico de ratos que se movimentam livremente. Anais da Academia Nacional de Ciências dos Estados Unidos da América. 1988;85: 5274 – 8. [Artigo gratuito do PMC] [PubMed]
- DiMeo AN, Wood RI. Auto-administração de estrogênio e diidrotestosterona em hamsters machos. Hormônios e comportamento. 2006;49: 519 – 26. [PubMed]
- DiPasquale M. Esteróides Anabolizantes. Em: Tarter RE, Ammerman RT, Ott PJ, editores. Manual de Abuso de Substâncias. Plenum Press; NY: 1998. pp. 547 – 565.
- Dominguez J, Riolo JV, Xu Z, casco EM. Regulação pela amígdala medial da cópula e liberação pré-óptica medial de dopamina. Journal of Neuroscience. 2001;21: 349 – 355. [PubMed]
- Dominguez JM, Hull EM. Estimulação da amígdala medial aumenta a liberação de dopamina pré-óptica medial: implicações para o comportamento sexual de ratos machos. Pesquisa do cérebro. 2001;917: 225 – 229. [PubMed]
- Du J, Lorrain DS, Hull EM. A castração diminui o extracelular, mas aumenta a dopamina intracelular na área pré-óptica medial de ratos machos. Pesquisa do cérebro. 1998;782: 11 – 17. [PubMed]
- Eckenhoff MF, Rakic P. Natureza e destino de células proliferativas no giro denteado hipocampal durante a vida útil do macaco rhesus. Journal of Neuroscience. 1988;8: 2729 – 47. [PubMed]
- Everitt BJ, Stacey P. Estudos do comportamento instrumental com reforço sexual em ratos machos (Rattus norvegicus): II. Efeitos de lesões na área pré-óptica, castração e testosterona. Jornal de Psicologia Comparada. 1987;101: 407 – 19. [PubMed]
- Gallaway S. A Bíblia esteróide Belle International Press; Sacramento, CA: 1997.
- Galligani N, Renck A, Hansen S. Perfil de personalidade de homens que usam esteróides androgênicos anabólicos. Hormônios e comportamento. 1996;30: 170 – 5. [PubMed]
- Grimes JM, Melloni RH, Jr. Alterações prolongadas no sistema neural da serotonina após a cessação da exposição de esteróides anabólicos androgênicos adolescentes em hamsters (Mesocricetus auratus) Neurociência Comportamental. 2006;120: 1242 – 51. [PubMed]
- Hannan CJ, Jr., Friedl KE, Zold A, Kettler TM, Plymate SR. Alterações psicológicas e séricas de ácido homovanílico em homens que receberam esteróides androgênicos. Psiconeuroendocrinologia. 1991;16: 335 – 43. [PubMed]
- Harrison RJ, Connor DF, Nowak C, Nash K e Melloni RH., Jr O tratamento anabólico androgênico esteróide crônico durante a adolescência aumenta a vasopressina hipotalâmica anterior e a agressão em hamsters intactos. Psiconeuroendocrinologia. 2000;25: 317 – 38. [PubMed]
- Ele J, tripulações FT. A neurogênese diminui durante a maturação do cérebro da adolescência para a idade adulta. Pharmacology, Biochemistry & Behavior. 2007;86: 327 – 33.
- Henderson LP. Modulação de esteróides da transmissão mediada por receptores GABAA no hipotálamo: efeitos sobre a função reprodutiva. Neurofarmacologia. 2007;52: 1439 – 53. [Artigo gratuito do PMC] [PubMed]
- Casco EM, Du J, Lorrain DS, Matuszewich L. Dopamina extracelular na área pré-óptica medial: implicações para a motivação sexual e controle hormonal da cópula. Journal of Neuroscience. 1995;15: 7465 – 7471. [PubMed]
- Casco EM, Meisel RL, Sachs BD. Comportamento sexual masculino Em: Pfaff DW, Arnold AP, Etgen AM, Fahrbach SE, Rubin RT, editores. Hormônios, Cérebro e Comportamento. Imprensa Acadêmica; Nova Iorque: 2002. pp. 3 – 137.
- Casco EM, Wood RI, McKenna KE. Neurobiologia do comportamento sexual masculino. Em: Neill JD, editor. Fisiologia da Reprodução. Vol. 1. Elsevier Press; Nova Iorque: 2006. pp. 1729 – 1824.
- Huttenlocher PR, Dabholkar AS. Diferenças regionais na sinaptogênese no córtex cerebral humano. Jornal de Neurologia Comparativa. 1997;387: 167 – 78. [PubMed]
- Johnson LR, Wood RI. Autoadministração oral de testosterona em hamsters machos. Neuroendocrinologia. 2001;73: 285 – 92. [PubMed]
- Johnston LD, O'Malley PM, Bachman JG. Alunos do ensino secundário (NIH Publication No. 03 – 5375) I. Bethesda, MD: Instituto Nacional sobre Abuso de Drogas; 2003. Monitorando o Futuro os resultados da pesquisa nacional sobre o uso de drogas, 1975-2002.
- Fundação da Família Kaiser. Atividade sexual adolescente nos EUA. 2005. págs. # 3040 – 02.
- Kashon ML, Hayes MJ, Shek PP, Sisk CL. Regulação da imunorreatividade do receptor androgênico cerebral por andrógenos em furões machos pré-púberes. Biologia da Reprodução. 1995;52: 1198 – 205. [PubMed]
- Kindlundh AM, Bergstrom M, Monazzam A, Hallberg M., Blomqvist G, Langstrom B, Nyberg F. Efeitos dopaminérgicos após tratamento crônico com nandrolona visualizado em cérebro de ratos por tomografia por emissão de pósitrons. Progress in NeuroPsychopharmacology & Biological Psychiatry. 2002;26: 1303 – 8.
- Kindlundh AM, Lindblom J, L Bergstrom, Wikberg JE, Nyberg F. O decanoato de nandrolona esteróide anabólico androgênico afeta a densidade de receptores de dopamina no cérebro de ratos machos. Revista Européia de Neurociência. 2001;13: 291 – 6. [PubMed]
- Kindlundh AM, Lindblom J, Nyberg F. A administração crônica com decanoato de nandrolona induz alterações no conteúdo do transcrito gênico dos receptores de dopamina D (1) - e D (2) no cérebro de ratos. Pesquisa do cérebro. 2003;979: 37 – 42. [PubMed]
- Rei BE, Packard MG, Alexander GM. Propriedades afetivas de injeções intra-mediais de testosterona em áreas pré-ópticas em ratos machos. Cartas de neurociência. 1999;269: 149 – 52. [PubMed]
- Koob GF, Nestler EJ. A neurobiologia da dependência de drogas. Journal of Neuropsychiatry & Clinical Neurosciences. 1997;9: 482 – 97. [PubMed]
- Kouri EM, Lukas SE, Papa HG, Jr., Oliva PS. Resposta agressiva aumentada em voluntários do sexo masculino após a administração de doses gradualmente crescentes de cipionato de testosterona. Dependência de drogas e álcool. 1995;40: 73 – 9. [PubMed]
- Kritzer MF. A gonadectomia a longo prazo afeta a densidade dos axônios imunorreativos à tirosina hidroxilase - mas não à dopamina beta-hidroxilase, colina acetiltransferase ou serotonina nos córtices pré-frontais mediais de ratos machos adultos. Córtex cerebral. 2003;13: 282 – 296. [PubMed]
- Kurling S, Kankaanpaa A, Ellermaa S, T Karila, Seppala T. O efeito do tratamento sub-crônico decanoato de nandrolona em sistemas neuronais dopaminérgicos e serotoninérgicos no cérebro de ratos. Pesquisa do cérebro. 2005;1044: 67 – 75. [PubMed]
- Lambert JJ, Belelli D, Peden DR, Vardy AW, Peters JA. Modulação neuroesteróide de receptores GABAA. Progresso na neurobiologia. 2003;71: 67 – 80. [PubMed]
- Lenroot RK, Giedd JN. Desenvolvimento cerebral em crianças e adolescentes: insights da ressonância magnética anatômica. Neuroscience & Biobehavioral Review. 2006;30: 718 – 29.
- Lesting J, Neddens J, Teuchert-Noodt G. Ontogenia da inervação da dopamina no nucleus accumbens dos gerbilos. Pesquisa do cérebro. 2005;1066: 16 – 23. [PubMed]
- Malayev A, Gibbs TT, Farb DH. A inibição da resposta de NMDA pelo sulfato de pregnenolona revela modulação seletiva de subtipo de receptores NMDA por esteróides sulfatados. British Journal of Pharmacology. 2002;135: 901 – 9. [Artigo gratuito do PMC] [PubMed]
- Martinez M, Guillen-Salazar F, Salvador A, Simon VM. Agressão intermale bem sucedida e preferência de lugar condicionada em ratos. Fisiologia e comportamento. 1995;58: 323 – 8. [PubMed]
- Meek LR, Romeo RD, Novak CM, Sisk CL. Ações da testosterona em hamsters machos pré-púberes e pós-púberes: dissociação de efeitos no comportamento reprodutivo e na imunorreatividade do receptor androgênico cerebral. Hormônios e comportamentos. 1997;31: 75 – 88.
- Meisel RL, Joppa MA. Preferência de lugar condicionada em hamsters femininos depois de encontros agressivos ou sexuais. Fisiologia e comportamento. 1994;56: 1115 – 8. [PubMed]
- Melloni RH, Jr., Connor DF, Pendure PT, Harrison RJ, Ferris CF. Exposição a esteróides anabólicos androgênicos durante a adolescência e comportamento agressivo em hamsters dourados. Fisiologia e Comportamento. 1997;61: 359 – 64. [PubMed]
- Menard C, Harlan R. Up-regulação da imunorreatividade do receptor de androgênio no cérebro de ratos por esteróides anabolizantes androgênicos. Pesquisa do cérebro. 1993;622: 226 – 236. [PubMed]
- Mermelstein PG, Becker JB, DJ Surmeier. O estradiol reduz as correntes de cálcio nos neurônios neoestriais de ratos através de um receptor de membrana. Journal of Neuroscience. 1996;16: 595 – 604. [PubMed]
- Midgley SJ, Heather N, Davies JB. Níveis de agressão entre um grupo de usuários de esteróides anabólicos androgênicos. Medicina, Ciência e Direito. 2001;41: 309 – 14.
- Molenda-Figueira, HN, Salas-Ramirez, KY, Schulz, KM, Zehr, JL, Montalto, PR, Sisk, CL. A experiência social adolescente restaura o comportamento ejaculatório de adultos em hamsters sírios machos sem testosterona na puberdade. Sociedade de Neuroendocrinologia Comportamental; Pacific Grove, CA: 2007.
- Noble RG, Alsum PB. Dimorfismos sexuais dependentes de hormônios no hamster dourado (Mesocricetus auratus) Fisiologia e comportamento. 1975;14: 567 – 74. [PubMed]
- Nunez JL, Lauschke DM, Juraska JM. Morte celular no desenvolvimento do córtex posterior em ratos machos e fêmeas. Jornal de Neurologia Comparativa. 2001;436: 32 – 41. [PubMed]
- Nunez JL, Sodhi J, Juraska JM. Hormônios ovarianos após o dia pós-natal 20 reduzem o número de neurônios no córtex visual primário de ratos. Jornal de Neurobiologia. 2002;52: 312 – 21. [PubMed]
- O'Connor DB, Archer J, Wu FC. Efeitos da testosterona no humor, agressividade e comportamento sexual em homens jovens: um estudo duplo-cego, controlado por placebo, cruzado. Journal of Clinical Endocrinology & Metabolism. 2004;89: 2837 – 45. [PubMed]
- Packard MG, Cornell AH, Alexander GM. Recompensando propriedades afetivas de injeções intra-nucleus accumbens de testosterona. Neurociência Comportamental. 1997;111: 219 – 24. [PubMed]
- Parfitt DB, Thompson RC, Richardson HN, Romeo RD, Sisk CL. O ARNm de GnRH aumenta com a puberdade no cérebro de hamster sírio masculino. Jornal de neuroendocrinologia. 1999;11: 621 – 7. [PubMed]
- Parrott AC, Choi PY, Davies M. Uso de esteróides anabolizantes por atletas amadores: efeitos sobre estados de humor psicológicos. Journal of Sports Medicine & Physical Fitness. 1994;34: 292 – 8. [PubMed]
- Patton PE, Novy MJ, Lee DM, Hickok LR. O diagnóstico e o resultado reprodutivo após o tratamento cirúrgico do útero septado completo, cérvix duplicado e septo vaginal. American Journal of Obstetrics & Gynecology. 2004;190: 1669 – 75. 1675 – 8. [PubMed]
- Paus T, Collins DL, Evans AC, G Leonard, Pike B, Zijdenbos A. Maturação da matéria branca no cérebro humano: uma revisão de estudos de ressonância magnética. Boletim de Pesquisa do Cérebro. 2001;54: 255 – 66. [PubMed]
- Perry PJ, Kutscher EC, Lund BC, Yates WR, TL Holman, Demers L. Medidas de agressão e alterações de humor em levantadores de peso masculinos com e sem o uso de esteróides anabolizantes androgênicos. Jornal de Ciências Forenses. 2003;48: 646 – 51. [PubMed]
- Peters KD, Wood RI. Dependência de andrógenos em hamsters: overdose, tolerância e potenciais mecanismos opioidérgicos. Neurociência. 2005;130: 971 – 81. [PubMed]
- Pfaus JG, Damsma G, GG Nomikos, Wenkstern DG, CD Blaha, Phillips AG, Fibiger HC. O comportamento sexual aumenta a transmissão central de dopamina no rato macho. Pesquisa do cérebro. 1990;530: 345 – 348. [PubMed]
- Fênix CH, Goy RW, Gerall AA, Jovem WC. Ação de organização do propionato de testosterona administrado no período pré-natal sobre os tecidos mediando o comportamento de acasalamento na cobaia fêmea. Endocrinologia. 1959;65: 369 – 82. [PubMed]
- Pinos H, Collado P, M Rodriguez-Zafra, Rodriguez C, S Segovia, Guillamon A. O desenvolvimento de diferenças entre os sexos no locus coeruleus do rato. Boletim de Pesquisa do Cérebro. 2001;56: 73 – 8. [PubMed]
- Papa HG, Jr, Katz DL. Homicídio e quase-homicídio por usuários de esteróides anabolizantes [ver comentário] Jornal de psiquiatria clínica. 1990;51: 28 – 31. [PubMed]
- Papa HG, Jr, Katz DL. Efeitos psiquiátricos e médicos do uso de esteróides anabólicos androgênicos. Um estudo controlado de atletas 160. Arquivos da psiquiatria geral. 1994;51: 375 – 82. [PubMed]
- Papa HG Jr., Kouri EM, Powell KF, Campbell C, Katz DL. Uso de esteróides anabólicos androgênicos entre os presos da 133. Psiquiatria Abrangente. 1996;37: 322 – 7. [PubMed]
- Putnam SK, J Du, Sato S, Hull EM. A restauração de testosterona do comportamento copulatório correlaciona-se com a liberação de dopamina pré-óptica medial em ratos machos castrados. Hormônios e comportamento. 2001;39: 216 – 224. [PubMed]
- Putnam SK, Sato S e Hull EM. Efeitos de metabólitos de testosterona na copulação e liberação medial de dopamina pré-óptica em ratos machos castrados. Hormônios e comportamento. 2003;44: 419 – 26. [PubMed]
- Putnam SK, Sato S e Riolo JV, Hull EM. Efeitos dos metabólitos da testosterona na copulação, dopamina pré-óptica medial e imunorreatividade da NOS em ratos machos castrados. Hormônios e comportamento. 2005;47: 513 – 522. [PubMed]
- Rankin SL, Partlow GD, McCurdy RD, ED Giles, Fisher KR. Neurogênese pós-natal no núcleo contendo vasopressina e oxitocina do hipotálamo de porco. Pesquisa do cérebro. 2003;971: 189 – 96. [PubMed]
- Ricci LA, Rasakham K, Grimes JM, Melloni RH, Jr. A atividade e expressão do receptor Serotonina-1A modulam a agressão induzida por esteroides anabólicos / androgênicos em adolescentes hamsters. Pharmacology, Biochemistry & Behavior. 2006;85: 1 – 11.
- Romeo RD, Cook-Wiens E, Richardson HN, Sisk CL. A dihidrotestosterona ativa o comportamento sexual em hamsters machos adultos, mas não em juvenis. Fisiologia e comportamento. 2001;73: 579 – 84. [PubMed]
- Romeo RD, Diedrich SL, Sisk CL. Imunorreatividade do receptor estrogênico em hamsters sírios pré-púberes e adultos. Cartas de neurociência. 1999;265: 167 – 70. [PubMed]
- Romeo RD, DB Parfitt, Richardson HN, Sisk CL. Os feromônios provocam níveis equivalentes de imunorreatividade de Fos em hamsters sírios pré-púberes e adultos. Hormônios e comportamento. 1998;34: 48 – 55. [PubMed]
- Romeo RD, Richardson HN, Sisk CL. Puberdade e maturação do cérebro masculino e comportamento sexual: reformulando um potencial comportamental. Neuroscience & Biobehavioral Reviews. 2002a;26: 381 – 91. [PubMed]
- Romeo RD, Wagner CK, Jansen HT, Diedrich SL, Sisk CL. O estradiol induz receptores de progesterona hipotalâmicos, mas não ativa o comportamento de acasalamento em hamsters machos (Mesocricetus auratus) antes da puberdade. Neurociência Comportamental. 2002b;116: 198 – 205. [PubMed]
- Salas-Ramirez KY, Montalto PR, Sisk CL. Esteróides androgênicos anabólicos (AAS) afetam diferencialmente comportamentos sociais em hamsters sírios adolescentes e adultos do sexo masculino. Hormônios e comportamento. 2008 na imprensa.
- SAMHSA / OEA. Publicação DHHS Não (SMA) 1996. 1994 Inquérito Domiciliar Nacional sobre Abuso de Drogas, Principais Resultados 1994; pp. 96 – 3085.
- SAMHSA / OEA. Resultados da Pesquisa Nacional 2004 sobre Uso de Drogas e Saúde: Resultados Nacionais. 2005. Série NSDUH H-28, Publicação DHHS No. SMA 05 – 4062.
- Sato SM, Johansen J, Jordan CL, Wood RI. Autoadministração de andrógenos em ratos Tfm. 10th Encontro Anual da Sociedade de Neuroendocrinologia Comportamental.2006.
- Sato SM, Wood RI. Autoadministração de esteróides androgênicos anabólicos impermeáveis à membrana (aas) em hamsters sírios. 11th Encontro Anual da Sociedade de Neuroendocrinologia Comportamental.2007.
- Schroeder JP, Packard MG. Papel dos subtipos de receptores de dopamina na aquisição de uma preferência de testosterona condicionada em ratos. Cartas de neurociência. 2000;282: 17 – 20. [PubMed]
- Schulte HM, Hall MJ, Boyer M. Violência doméstica associada ao abuso de esteróides anabolizantes. Jornal americano da psiquiatria. 1993;150: 348. [PubMed]
- Schulz KM, Menard TA, Silva DA, Albers HE, Sisk CL. A exposição ao hormônio testicular durante a adolescência organiza o comportamento de marcação de flanco e a ligação do receptor de vasopressina no septo lateral. Hormônios e comportamento. 2006;50: 477 – 83. [PubMed]
- Schulz KM, Richardson HN, Romeo RD, Morris JA, Lookingland KJ, Sisk CL. Respostas dopaminérgicas da área pré-óptica medial aos feromônios femininos desenvolvem-se durante a puberdade no hamster sírio masculino. Pesquisa do cérebro. 2003;988: 139 – 45. [PubMed]
- Schulz KM, Richardson HN, Zehr JL, Osetek AJ, Menard TA, Sisk CL. Os hormônios gonadais masculinizam e defeminizam comportamentos reprodutivos durante a puberdade no hamster sírio masculino. Hormônios e comportamento. 2004;45: 242 – 9. [PubMed]
- Schulz KM, Sisk CL. Hormônios puberais, o cérebro adolescente e o amadurecimento dos comportamentos sociais: Lições do hamster sírio. Endocrinologia Molecular e Celular. 2006:254–255. 120–6.
- Schulz KM, Zehr JL, Salas-Ramirez KY, Sisk CL. Planejador de reuniões em neurociência. Sandiego, CA: Society for Neuroscience; 2007. A adolescência é um segundo período sensível para os efeitos organizadores da testosterona no comportamento reprodutivo masculino adulto? 2007 Online.
- Scott JP, Stewart JM, De Ghett VJ. Períodos críticos na organização dos sistemas. Psicobiologia do Desenvolvimento. 1974;7: 489 – 513. [PubMed]
- Shughrue PJ, MV Lane, Merchenthaler I. Distribuição comparativa de receptor de estrogênio-alfa e beta-mRNA no sistema nervoso central do rato. Jornal de Neurologia Comparativa. 1997;388: 507 – 25. [PubMed]
- Simons-Morton BG, Haynie DL. Preditores psicossociais do aumento do tabagismo entre escolares do sexto ano. American Journal of Health Behavior. 2003;27: 592 – 602. [PubMed]
- Sisk CL, Zehr JL. Os hormônios puberais organizam o cérebro e o comportamento do adolescente. Fronteiras na Neuroendocrinologia. 2005;26: 163 – 74. [PubMed]
- Sowell ER, Thompson PM, Leonard CM, Bem-vindo SE, Kan E, Toga AW. Mapeamento longitudinal da espessura cortical e crescimento cerebral em crianças normais. Journal of Neuroscience. 2004;24: 8223 – 31. [PubMed]
- Sowell ER, Thompson PM, Tessner KD, Toga AW. O mapeamento continuou o crescimento do cérebro e a redução da densidade da matéria cinzenta no córtex frontal dorsal: relações inversas durante a maturação cerebral pós-adolescente. Journal of Neuroscience. 2001;21: 8819 – 29. [PubMed]
- Spear LP. O cérebro do adolescente e as manifestações comportamentais relacionadas à idade. Neuroscience & Biobehavioral Review. 2000;24: 417 – 63.
- Su TP, Pagliaro M, Schmidt PJ, Pickar D, Wolkowitz O, Rubinow DR. Efeitos neuropsiquiátricos de esteróides anabolizantes em voluntários masculinos normais. JAMA. 1993;269: 2760 – 4. [PubMed]
- Thiblin I, Finn A, Ross SB e Stenfors C. Aumento das atividades dopaminérgicas e 5-hidroxitriptaminérgicas no cérebro de ratos machos após tratamento prolongado com esteroides androgênicos anabólicos. British Journal of Pharmacology. 1999;126: 1301 – 6. [Artigo gratuito do PMC] [PubMed]
- Thomas P, Dressing G, Pang Y, Berg H, Tubbs C, Benninghoff A, Doughty K. Progestina, receptores acoplados à proteína G de estrogênio e andrógeno em gônadas de peixe. Esteróides 2006;71: 310 – 6. [PubMed]
- Tricker R, Casaburi R, Storer TW, Clevenger B, Berman N, Shirazi A, Bhasin S. Os efeitos de doses suprafisiológicas de testosterona no comportamento irado em homens saudáveis eugonadais - um estudo de centro de pesquisa clínica. Journal of Clinical Endocrinology & Metabolism. 1996;81: 3754 – 8. [PubMed]
- Triemstra JL, Nagatani S, Wood RI. Sugestões quimiossensoriais são essenciais para a liberação de dopamina induzida pelo acasalamento em MPOA de hamsters sírios machos. Neuropsychopharmacology. 2005;30: 1436 – 42. [PubMed]
- Triemstra JL, Sato SM, Wood RI. A testosterona e o nucleus accumbens dopamine no hamster sírio masculino. Psiconeuroendocrinologia (no prelo)
- Van Eenoo P, Delbeke FT. A prevalência de doping na Flandres em comparação com a prevalência de doping nos esportes internacionais. Revista Internacional de Medicina Esportiva. 2003;24: 565 – 570. [PubMed]
- WADA Descobertas analíticas adversas relatadas por laboratórios acreditados. 2006. http://www.wada-ama.org.
- Wesson DW, McGinnis meu. Empilhamento de esteróides anabólicos androgênicos (EAA) durante a puberdade em ratos: avaliação neuroendócrina e comportamental. Pharmacology, Biochemistry & Behavior. 2006;83: 410 – 9.
- Wichstrom L, Pedersen W. Uso de esteróides anabólicos androgênicos na adolescência: ganhar, parecer bom ou ser ruim? Jornal de Estudos sobre Álcool. 2001;62: 5 – 13. [PubMed]
- Wood RI, Johnson LR, Chu L., Schad C, Self DW. Reforço de testosterona: administração intravenosa e intracerebroventricular em ratos e hamsters machos. Psicofarmacologia. 2004;171: 298 – 305. [PubMed]
- Wood RI, Newman SW. Receptores androgênicos e estrogênicos coexistem com neurônios individuais no cérebro do hamster sírio. Neuroendocrinologia. 1995;62: 487 – 97. [PubMed]
- Wood RI, Swann JM. Integração neuronal de sinais quimiossensoriais e hormonais que controlam o comportamento sexual masculino. Em: Wallen K, Schneider JS, editores. Reprodução no contexto. MIT Press; Cambridge: 1999. pp. 423 – 444.
- Zahm DS, Heimer L. Duas vias transpalais originadas no núcleo do rato accumbens. Jornal de Neurologia Comparativa. 1990;302: 437 – 46. [PubMed]