Front Behav Neurosci. 19 de maio de 2015;9:128. doi: 10.3389/fnbeh.2015.00128. eCollection 2015.
Andreatta M 1 , Pauli P 1.
Sumário
No condicionamento clássico, um estímulo inicialmente neutro (estímulo condicionado, CS) torna-se associado a um evento biologicamente saliente (estímulo não condicionado, US), que pode ser dor (condicionamento aversivo) ou comida (condicionamento apetitivo). Após algumas associações, o CS é capaz de iniciar respostas defensivas ou consumatórias, respectivamente. Ao contrário do condicionamento aversivo, o condicionamento apetitivo raramente é investigado em humanos, embora sua importância para comportamentos normais e patológicos (por exemplo, obesidade, vício) seja inegável. O presente estudo pretende traduzir as descobertas em animais sobre o condicionamento apetitivo para humanos usando alimentos como um US. Trinta e três participantes foram investigados entre 8 e 10 horas, sem café da manhã, para garantir que sentiam fome. Durante duas fases de aquisição, uma forma geométrica (avCS +) previu um US aversivo (choque elétrico doloroso), outra forma (appCS +) previu um US apetitivo (chocolate ou pretzel salgado de acordo com a preferência dos participantes) e uma terceira forma (CS- ) não previu nenhum dos EUA. Em uma fase de extinção, essas três formas mais uma nova forma (NOVA) foram apresentadas novamente sem entrega nos Estados Unidos. Avaliações de valência e excitação, bem como respostas de sobressalto e condutância da pele (SCR) foram coletadas como índices de aprendizagem. Encontramos condicionamento aversivo e apetitivo bem-sucedido. Por um lado, o avCS + foi classificado como mais negativo e mais estimulante do que o CS– e a potenciação do sobressalto induzida e o SCR aprimorado. Por outro lado, o appCS + foi classificado como mais positivo do que o CS– e induziu atenuação de sobressalto e maior SCR. Em resumo, confirmamos com sucesso achados em animais em humanos (famintos), demonstrando aprendizado apetitivo e aprendizado aversivo normal.
Introdução
A previsão de ameaças e de alimento é crucial para a sobrevivência de qualquer organismo. No condicionamento clássico ( Pavlov, 1927 ), um estímulo precede um evento aversivo, como um leve choque elétrico doloroso (estímulo incondicionado aversivo, EI), ou um evento apetitivo, como uma bolinha de comida (estímulo apetitivo, EI), diversas vezes. Posteriormente, esse estímulo isoladamente (agora denominado EC, EC+) é capaz de provocar respostas defensivas ou consumatórias, respectivamente. O primeiro tipo de aprendizagem associativa é chamado de condicionamento aversivo, enquanto o segundo é chamado de condicionamento apetitivo.
Embora a predição de eventos apetitivos seja tão importante para a sobrevivência quanto a predição de eventos aversivos, o condicionamento apetitivo é notavelmente menos investigado em animais (Bouton e Peck, 1989; Koch et al., 1996; McDannald et al., 2011, para uma revisão, veja Martin-Soelch e outros, 2007), bem como em humanos (Klucken et al., 2009, 2013; Austin e Duka, 2010; Delgado et al., 2011; Levy e Glimcher, 2011). Essa falta de pesquisa pode ser devida à complexidade do paradigma apetitivo em relação ao aversivo. Por exemplo, a comida como um reforçador primário deve ser entregue quando o organismo está com fome, a fim de ser gratificante (para uma revisão recente, ver Dickinson e Balleine, 1994; Clark et al., 2012). Na pesquisa humana, essa dificuldade foi superada com o uso do dinheiro (Austin e Duka, 2010; Delgado et al., 2011; Levy e Glimcher, 2011) ou imagens eróticas (Klucken et al., 2009, 2013). No entanto, estudos de neuroimagem apontaram que os reforços primários (ou seja, lanches ou bebidas) e secundários (ou seja, o dinheiro) ativam algumas regiões cerebrais comuns (por exemplo, estriado), mas também implicam padrões distintos de ativação (Delgado et al., 2011; Levy e Glimcher, 2011).
Até onde sabemos, apenas alguns estudos de condicionamento em humanos examinaram os efeitos de reforçadores apetitivos primários, como odor ( Gottfried et al., 2002 ), água ( Kumar et al., 2008 ) ou comida ( Prévost et al., 2012 ). No primeiro estudo, Gottfried et al. (2002) associaram faces neutras (ECs) a um odor desagradável, agradável ou neutro. Curiosamente, eles encontraram maior ativação no córtex orbitofrontal (COF) e no estriado ventral em resposta ao EC+ apetitivo em comparação com o EC+ aversivo. Eles concluíram que o COF processa o valor do odor e está envolvido na transferência do valor afetivo do sistema olfativo (EI) para o sistema visual (EC). A ativação (ventro)estriatal foi interpretada como reflexo da RC apetitiva elicitada pelo EC+ apetitivo. No segundo estudo, Kumar et al. Em 2008, Prévost et al. convidaram seus participantes (controles saudáveis e pacientes com depressão maior) para o laboratório no início da manhã e pediram que se abstivessem de beber durante a noite para garantir que estivessem com sede antes do exame. Imagens fractais foram apresentadas como ECs e 0.1 ml de água como EI. Curiosamente, entre outras ativações, os participantes saudáveis (mas não os pacientes com depressão) mostraram maior ativação no estriado ventral em resposta ao EC+ apetitivo, sugerindo que esse estímulo foi processado como recompensador. No terceiro estudo, Prévost et al. (2012) também apresentaram imagens fractais como ECs e lanches doces ou salgados como EI, de acordo com a preferência dos participantes. O EC foi apresentado por 6 segundos e, durante o último segundo, uma imagem de comida era apresentada adicionalmente. Cada vez que a imagem da comida aparecia, o experimentador colocava um pedaço de comida nas mãos dos participantes, que podiam consumi-lo imediatamente. Infelizmente, os autores não relataram a ativação cerebral em resposta ao EC+ apetitivo durante a fase de condicionamento clássico. No entanto, eles observaram menor desaceleração cardíaca em resposta ao CS+ recompensado em comparação com o CS– não recompensado, indicando efeitos de condicionamento diferencial.
A falta de estudos que utilizem a resposta de sobressalto como índice de condicionamento apetitivo é surpreendente, especialmente considerando seu amplo uso no condicionamento aversivo. A resposta de sobressalto é uma resposta defensiva ancestral e automática a eventos aversivos súbitos, inesperados e intensos ( Koch, 1999 ). Essa resposta defensiva é mediada por uma via neuronal relativamente simples que envolve os neurônios da raiz coclear, o núcleo pontino caudal da formação reticular (PnC) e os motoneurônios espinais ( Fendt e Fanselow, 1999 ; Koch, 1999 ). Estudos em animais revelaram que a potenciação do sobressalto depende das projeções da amígdala para o PnC ( Fendt e Fanselow, 1999 ; Koch, 1999 ), enquanto a atenuação do sobressalto depende de um núcleo accumbens intacto (NAcc, Koch, 1999 ). Tal modulação da resposta de sobressalto é uma medida implícita útil da valência dos estímulos de primeiro plano apresentados. Assim, a potenciação indica valência negativa, enquanto a atenuação indica valência positiva, ambas sem serem grandemente influenciadas por processos cognitivos ( Hamm e Weike, 2005 ; Andreatta et al., 2010 ). Até onde sabemos, apenas um estudo com animais investigou o condicionamento apetitivo medindo as respostas de sobressalto como medida dependente. Curiosamente, os ratos examinados mostraram atenuação do sobressalto a um EC+ (isto é, luz) associado à administração de uma solução de sacarose. Notavelmente, essa atenuação estava prejudicada nos animais com lesões no NAcc, mas não naqueles com lesões na amígdala, sugerindo que o NAcc desempenha um papel específico na eliciação de RCs apetitivas e na atenuação das respostas de sobressalto ( Koch et al., 1996 ).
O presente estudo é, até onde sabemos, o primeiro a traduzir esse paradigma de condicionamento apetitivo para humanos, utilizando reforçadores primários como estímulo incondicionado (EI), ou seja, alimentos doces (Smarties® de chocolate ) ou salgados (pequeno pretzel salgado), e a modulação do reflexo de sobressalto como medida das respostas condicionadas (RCs). Esperávamos que o estímulo condicionado apetitivo (EC+) desencadeasse RCs apetitivas fortes, refletidas na atenuação do reflexo de sobressalto, no aumento da resposta eletrodérmica (RCD) e na avaliação positiva da valência, em comparação com os outros estímulos, ou seja, o estímulo condicionado atípico (EC+) e o estímulo condicionado (EC–).
Materiais e Métodos
Participantes
Quarenta e dois voluntários aceitaram participar do estudo e receberam créditos acadêmicos. Nove participantes foram excluídos da análise: dois devido a problemas técnicos, três por terem sido classificados como não respondedores (amplitude média do reflexo de sobressalto < 5 μV) e quatro por não apresentarem respostas de sobressalto suficientes por condição (mínimo = 2; para detalhes, consulte Materiais e Métodos). Ao final, 33 participantes foram considerados na análise (16 homens; idade média: 22.09 anos, DP : 2.84; variação: 18–29 anos). Quatro participantes não eram falantes nativos de alemão e seis eram canhotos. Um participante permaneceu alheio às associações entre os estímulos condicionados (EC) e os estímulos incondicionados (EI) durante todo o experimento (ver Procedimento), mas decidimos não excluí-lo, pois suas respostas foram normais e não afetaram os resultados.
Materiais
Estímulos Incondicionais (EUA)
Foram utilizados dois tipos de estímulos incondicionados (EI). Como EI aversivo, aplicamos um choque elétrico levemente doloroso no antebraço não dominante dos participantes. O choque elétrico foi administrado por meio de dois eletrodos com 9 mm de diâmetro e espaçamento de 30 cm. O estímulo elétrico consistiu em um pulso com frequência de 50 Hz e duração de 200 ms, gerado por um estimulador de corrente (Digitimer DS7A, Digitimer Ltd, Welwyn Garden City, Reino Unido, 400 V, máximo de 9.99 mA). A intensidade do choque elétrico foi determinada individualmente por meio de um procedimento de limiar descrito anteriormente ( Andreatta et al., 2010 ). Resumidamente, os participantes foram submetidos a duas séries de intensidades crescentes e decrescentes em intervalos de 0.5 mA. Eles deveriam classificar cada estímulo em uma escala visual de 0 (nenhuma sensação) a 10 (dor muito intensa), com 4 como ponto de ancoragem para o limiar (dor apenas perceptível). A intensidade média do estímulo elétrico foi de 2.12 mA ( DP = 0.56) e foi classificada como dolorosa ( M = 6.45, DP = 1.73). O estímulo incondicionado (EI) apetitivo consistia em um chocolate (Smarties® ) ou um pequeno pretzel salgado. A escolha do EI apetitivo dependia da preferência individual do participante, relatada durante a entrevista preliminar. Ou seja, os participantes deveriam informar se normalmente consumiam alimentos salgados ou doces no café da manhã. Eles também podiam escolher livremente entre o chocolate e o pretzel salgado durante o próprio experimento. Ao final, 22 participantes escolheram o chocolate e 11 o pequeno pretzel salgado.
Estímulos Condicionados (CS)
Formas geométricas (quadrado azul, círculo amarelo, triângulo verde, hexágono vermelho) com uma diagonal de 8 cm foram apresentadas como CSs. As formas foram apresentadas no meio de uma tela de computador preta para 8 s. Uma forma (avCS +) sempre esteve associada à US aversiva (choque elétrico doloroso), uma forma (appCS +) sempre esteve associada à US apetitiva (pretzel de chocolate ou salgado), uma forma (CS–) nunca esteve associada à aversão ou os USs apetitosos, e a quarta forma (NEW) foi apresentada na fase de extinção, mas não durante a fase de aquisição, a fim de assegurar sua neutralidade.
Sonda de Surto
O ruído branco de 103 dB com duração de 50 ms foi usado como uma prova de alarme. Os estímulos acústicos foram apresentados binauralmente em fones de ouvido e ocorreram aleatoriamente 4 a 6 s após o início da forma.
Questionários
Antes e depois do experimento, os participantes tiveram que preencher as versões alemãs do Inventário de Ansiedade Traço-Estado (STAI, Laux et al., 1981) e o Cronograma Positivo Negativo Afectado (PANAS, Krohne e outros, 1996) O STAI é um inventário para avaliar o traço e / ou ansiedade do estado dos participantes e consiste em 20 itens para as versões do traço e do estado. Nível de ansiedade dos participantes antes de (M = 37.06, SD = 7.80) e depois (M = 39.33, SD = 9.16) o experimento não mudou significativamente [t(32) = 1.61, p = 0.117]. Os escores de ansiedade do traço na amostra atual variaram entre 20 e 58 (M = 36.6, SD = 8.98), que é comparável ao intervalo normal publicado de adultos (Laux et al., 1981). O PANAS (Krohne e outros, 1996) é um índice de humor positivo e negativo. Indivíduos com pontuações altas na escala de afetos positivos (PAS) são propensos a emoções como entusiasmo, enquanto indivíduos com pontuações altas na escala de afetos negativos (NAS) são propensos a emoções como angústia. Cada item é composto por um adjetivo, e os participantes indicam em uma escala que varia de 1 (muito levemente) a 5 (extremamente) em que medida o adjetivo reflete seus sentimentos naquele momento particular. Nenhuma diferença significativa foi encontrada no efeito negativo dos participantes como resultado do experimento [começar: M = 11.67, SD = 2.29; fim: M = 12.88, SD = 4.69; t(32) = 1.55, p = 0.130]. De alguma forma, os participantes mudaram significativamente seu humor positivo desde o início (M = 26.72, SD = 4.70) até o final (M = 23.66, SD = 7.02) da experiência [t(31) = 3.11, p = 0.004]. Essa diminuição do humor positivo dos participantes pode estar relacionada ao desagrado do paradigma (foram apresentados choques elétricos dolorosos e também ruído branco aversivo).
Procedimento
Ao chegar ao laboratório, os participantes leram e assinaram um termo de consentimento informado, aprovado pelo comitê de ética do Departamento de Psicologia da Universidade de Würzburg. Eles não foram informados sobre a contingência entre CSs e USs. Depois de preencher os questionários, os eletrodos foram fixados e o procedimento do limiar de dor foi realizado como descrito acima.
Durante a fase de habituação , as quatro formas geométricas foram apresentadas duas vezes com um intervalo entre tentativas (ITI) variando entre 18 e 25 segundos (média: 21.5 segundos). Nenhum estímulo incondicionado (EI) ou estímulo de sobressalto foi aplicado durante esta fase.
Antes da fase de aquisição, sete surtos de ruído branco eram entregues a cada 7-15 s para diminuir a reatividade inicial do sobressalto.
As duas fases de aquisição seguintes foram idênticas (Figura 1 ). Cada fase de aquisição consistiu em 24 ensaios: 8 ensaios CS–, 8 ensaios avCS+ e 8 ensaios appCS+. A sequência de CS foi pseudorandomizada, com a única restrição de que o mesmo estímulo não poderia ser apresentado mais de duas vezes seguidas. Notavelmente, o avCS+ foi apresentado juntamente com um raio como símbolo do choque elétrico, e o estímulo incondicionado doloroso (US) foi apresentado no final. O appCS+ foi apresentado em conjunto com a imagem de Smarties ou um pretzel salgado, e o participante podia escolher um Smarties ou um pretzel de um pote. O CS– foi apresentado juntamente com um símbolo de proibição, e nenhum US foi apresentado. Durante três das 8 apresentações de CS de cada tipo, um estímulo de sobressalto foi aplicado entre 4 e 6 segundos após o início do estímulo. Três estímulos de sobressalto adicionais foram apresentados durante os intervalos entre ensaios (ITIs) para garantir sua imprevisibilidade e reduzir a habituação ao sobressalto. O intervalo entre estímulos (ITI), que consistia em uma tela preta, variou entre 18 e 25 segundos, com uma média de 21.5 segundos.
FIGURA 1
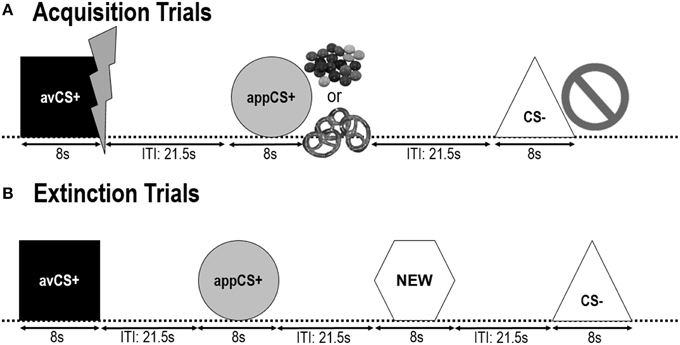
Figura 1. Ensaios durante as duas fases de aquisição (A) e a fase de extinção (B) . Os participantes aprenderam que uma forma (avCS+) previa um leve choque elétrico doloroso, uma forma (appCS+) previa um pedaço de chocolate ou um pequeno pretzel salgado (de acordo com sua preferência) e uma terceira forma (CS–) não previa nenhum evento biologicamente relevante. Cada forma foi apresentada em conjunto com uma imagem representando um choque elétrico, Smarties/pretzel salgado ou nada, dependendo da associação com o EI. Durante a fase de extinção, as três formas geométricas foram apresentadas novamente, mas nenhum EI foi fornecido. Além disso, uma quarta forma geométrica (NEW) foi apresentada como controle neutro.
Durante a fase de extinção , os participantes viram novamente as três formas geométricas (ou seja, o EC+ av, o EC+ app e o EC–), além de uma nova forma neutra (NOVA). Nenhum EI foi apresentado e as formas não foram exibidas em conjunto com imagens de flashes, chocolate/pretzels salgados ou proibições. Cada estímulo foi apresentado oito vezes em ordem pseudoaleatória (ou seja, o mesmo estímulo não foi apresentado mais de duas vezes seguidas), totalizando 32 ensaios. Estímulos de sobressalto foram apresentados em 4 das 8 apresentações de cada tipo de EC. Assim como nas fases de aquisição e habituação, os intervalos entre ensaios (IE) variaram entre 18 e 25 segundos, e 4 estímulos de sobressalto adicionais foram apresentados de forma imprevisível durante os IE.
Após cada fase, os participantes avaliaram a valência (agradabilidade) e a excitação (excitatória) dos CSs com escalas visuais analógicas (VAS) variando de 1 a 9. A escala de valência variou de “1” indicando “muito desagradável” a “9” indicando “muito agradável”; a escala de excitação variou de “1” indicando “calmo” a “9” indicando “emocionante”. Além disso, os valores de contingência foram avaliada após as duas fases de aquisição e a fase de extinção. Os participantes viram uma forma geométrica para os 1s e depois precisaram indicar se essa forma estava associada ao choque elétrico, com o pretzel de chocolate / salgado, sem nada, ou se não eram capazes de fazer qualquer associação. Notavelmente, todos os participantes (exceto um) estavam cientes da contingência após a Aquisição 2.
Redução de dados
As respostas fisiológicas foram gravadas com um amplificador 16 V-Amp e um software Vision Recorder V-Amp Edition (Versão 1.03.0004, BrainProducts Inc., Munique, Alemanha). Uma taxa de amostragem de 1000 Hz e um filtro de entalhe 50 Hz foram aplicados. As análises offline foram realizadas com o Brain Vision Analyzer (Versão 2.0; BrainProducts Inc., Munique, Alemanha).
Resposta de Surto
A resposta de sobressalto foi medida por meio de eletromiografia (EMG) no músculo orbicular do olho esquerdo com dois eletrodos de Ag/AgCl de 5 mm. De acordo com as diretrizes ( Blumenthal et al., 2005 ), um eletrodo foi posicionado sob a pupila e o segundo 1 cm lateralmente. Os eletrodos de terra e de referência foram colocados nos mastoides direito e esquerdo, respectivamente. Antes da fixação dos eletrodos, a pele foi levemente abrasada e limpa com álcool para manter a impedância abaixo de 10 kΩ. O sinal eletromiográfico foi filtrado offline com um filtro passa-alta de 28 Hz e um filtro passa-alta de 500 Hz. Em seguida, o sinal de EMG foi retificado e uma média móvel de 50 ms foi aplicada. Utilizamos os 50 ms anteriores ao início do estímulo de sobressalto como linha de base ( Grillon et al., 2006 ). As respostas aos estímulos de sobressalto foram pontuadas manualmente, e os ensaios com deslocamentos excessivos da linha de base (±5 μV) ou artefatos de movimento foram excluídos das análises subsequentes. Respostas de sobressalto inferiores a 5 μV foram codificadas como zero e consideradas para o cálculo da magnitude do sobressalto ( Blumenthal et al., 2005 ). No total, 10.4% dos ensaios foram rejeitados, e um mínimo de 2 de 3 respostas de sobressalto nas fases de aquisição e 4 de 8 respostas de sobressalto na fase de extinção para cada condição foram exigidos para manter o participante no grupo de análise. Por esse motivo, quatro participantes foram excluídos. A amplitude de pico foi definida como o pico máximo em relação à linha de base durante a janela de tempo de 20–120 ms após o início do estímulo de sobressalto. Os dados brutos foram então normalizados dentro dos sujeitos usando escores z e, em seguida, escores T, a fim de reduzir a influência da variabilidade individual e detectar melhor os processos psicológicos. As pontuações T foram calculadas em média para cada condição (avCS+, appCS+, CS–, NEW e ITI). Para investigar a potenciação ou atenuação do reflexo de sobressalto, as pontuações das respostas de sobressalto no intervalo entre estímulos (ITI) foram subtraídas das respostas de sobressalto em cada condição.
Resposta de Condutância da Pele (SCR)
A resposta de condutância da pele (RCP) foi registrada utilizando dois eletrodos de Ag/AgCl de 5 mm colocados na palma da mão não dominante. A resposta galvânica foi filtrada offline com um filtro passa-alta de 1 Hz. A RCP foi definida como a diferença (em μS) entre o início da resposta (1–3 s após o início do estímulo) e o pico da resposta ( Tranel e Damasio, 1994 ; Delgado et al., 2011 ). Ensaios contendo sondas de sobressalto não foram considerados na análise da RCP. Respostas abaixo de 0.02 μS foram codificadas como zero. Cinco participantes adicionais foram excluídos da análise da RCP por apresentarem uma RCP média inferior a 0.02 μS. Os dados brutos de condutância da pele foram transformados pela raiz quadrada para normalizar a distribuição e as pontuações foram calculadas como média para cada condição separadamente para as duas fases de aquisição (avCS+, appCS+, CS–) e para a fase de extinção (avCS+, appCS+, CS– e NOVO).
Análise Estatística
Todos os dados foram analisados com o SPSS for Windows (versão 20.0, SPSS Inc.). Para as respostas fisiológicas, análises de variância (ANOVA) multivariadas separadas foram calculadas para as duas fases de aquisição e a fase de extinção. A ANOVA para as fases de aquisição teve estímulo (avCS +, appCS +, CS–) e fase (Aquisição 1, Aquisição 2) como fatores dentro dos sujeitos. A ANOVA para a fase de extinção tinha apenas um estímulo (avCS +, appCS +, CS–, NEW) como um fator dentro dos sujeitos. As classificações de valência, excitação e contingência foram analisadas com ANOVAs separados, contendo os estímulos dos fatores dentro dos sujeitos (avCS +, appCS +, CS– e NEW) e fase. Este fator teve quatro níveis para as classificações de valência e excitação (T1: após a fase de habituação, T2: após a primeira fase de aquisição, T3: após a segunda fase de aquisição, T4: após a fase de extinção), mas três níveis para as classificações de contingência (T1: primeira fase de aquisição, T2: após a segunda fase de aquisição, T3: após a fase de extinção).
O nível alfa (α) foi definido em 0.05 para todas as análises. O tamanho do efeito é relatado como η 2 parcial.
Consistentes
As classificações de valência e ativação para cada fase são apresentadas na Figura 2 ; as respostas de sobressalto e as SCRs são apresentadas na Figura 3.
FIGURA 2
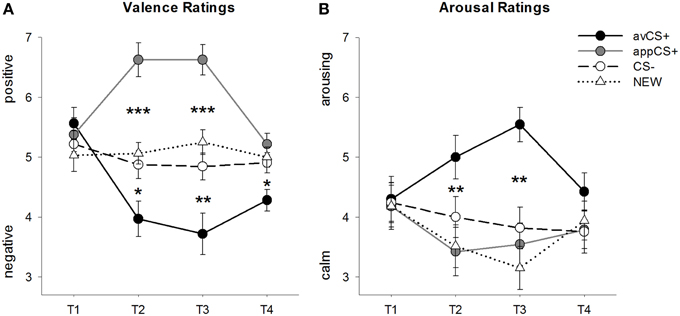
Figura 2. Avaliações de valência (A) e ativação (B) . As linhas (com erros padrão) representam as avaliações após a fase de habituação (T1), Aquisição 1 (T2), Aquisição 2 (T3) e a fase de extinção (T4). O EC+ aversivo (linha preta contínua) adquiriu valência negativa e alta ativação após as duas fases de aquisição em comparação com o EC– (linha preta tracejada) e o NOVO (linha preta pontilhada). É importante ressaltar que o EC+ apetitivo (linha cinza contínua) adquiriu valência positiva em comparação com o EC– e o NOVO. * p < 0.05, ** p > 0.01, *** p < 0.001.
FIGURA 3
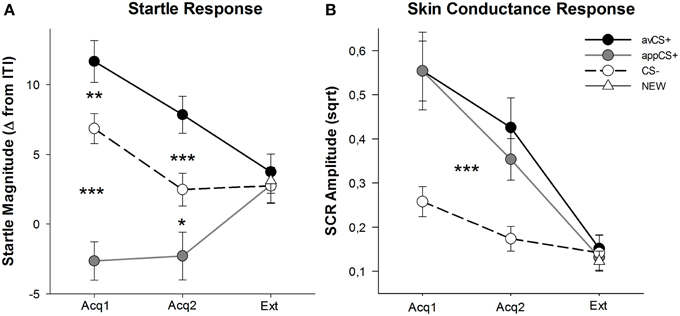
Figura 3. Respostas de sobressalto (A) e condutância da pele (B) (com erros padrão) durante a primeira fase de aquisição (Acq1), a segunda fase de aquisição (Acq2) e a fase de extinção (Ext) . As respostas de sobressalto foram significativamente potencializadas para o EC+ aversivo (linha preta contínua) e significativamente atenuadas para o EC+ apetitivo (linha cinza contínua) em comparação com o EC– (linha preta tracejada) durante as fases de aquisição. A resposta de condutância da pele (RCP) foi significativamente maior para o EC+ aversivo e o EC+ apetitivo em comparação com o EC–. Nenhuma diferença foi observada durante a fase de extinção. * p < 0.05, ** p > 0.01, *** p < 0.001.
classificações
A ANOVA para o classificações de valência durante a aquisição revelou efeitos principais significativos do estímulo [F(3, 93) = 17.26, GG-ε = 0.801, p <0.001, η parcial2 = 0.358] e fase [F(3, 93) = 3.30, GG-ε = 0.731, p = 0.039, parcial η2 = 0.096], bem como uma interação significativa entre estímulo e fase [F(9, 279) = 9.54, GG-ε = 0.463, p <0.001, η parcial2 = 0.235]. Acompanhamento t-testes indicam que as valências das quatro formas geométricas no início da experiência eram idênticas (ps> 0.19), enquanto após a Aquisição 1 e a Aquisição 2 o avCS + foi classificado como especialmente negativo e o appCS + como especialmente positivo. Especificamente, o avCS + foi classificado como mais negativamente valenciado em comparação com o CS– [Acq1: t(31) = 2.34, p = 0.026; Acq2: t(31) = 3.07, p = 0.004], o NOVO [Acq1: t(31) = 2.70, p = 0.011; Acq2: t(31) = 3.89, p <0.001], e o appCS + [Acq1: t(31) = 5.41, p <0.001; Acq2: t(31) = 6.11, p <0.001]. O appCS + foi classificado como significativamente mais positivo do que o CS– [Acq1: t(31) = 4.99, p <0.001; Acq2: t(31) = 5.31, p <0.001] e o NOVO [Acq1: t(31) = 4.92, p <0.001; Acq2: t(31) = 4.14, p <0.001]. As diferenças entre o CS– e o NOVO nunca foram significativas (ps> 0.18).
É importante ressaltar que não foram encontradas diferenças significativas ao comparar as classificações de valência para o appCS+ associado ao chocolate versus pretzel salgado [Acq1: t (30) = 0.03, p = 0.477; Acq2: t (30) = 0.29, p = 0.775].
Após a fase de extinção, o avCS + ainda foi classificado como mais negativo em comparação ao CS- [t(31) = 2.40, p = 0.023], o NOVO [t(31) = 3.40, p = 0.002] e o appCS + [t(31) = 3.35, p = 0.002]. Pelo contrário, a valência do appCS + não diferiu mais do CS- [t(31) = 1.77, p = 0.086] ou o NOVO [t(31) = 1.07, p = 0.293].
A ANOVA para o classificações de excitação durante a aquisição revelou um efeito principal significativo do estímulo [F(3, 96) = 7.07, GG-ε = 0.737, p = 0.001, parcial η2 = 0.181], mas não de fase [F(3, 96) = 1.27, GG-ε = 0.805, p = 0.289, parcial η2 = 0.038], e uma interação significativa entre estímulo e fase [F(9, 288) = 4.53, GG-ε = 0.582, p = 0.001, parcial η2 = 0.124]. Acompanhamento t-testes não indicaram diferenças significativas entre os estímulos em relação ao despertar inicial (ps> 0.74). No entanto, após as duas fases de aquisição, o avCS + foi classificado como mais excitante do que o NOVO [Acq1: t(32) = 2.99, p = 0.005; Acq2: t(32) = 5.97, p <0.001] e o appCS + [Acq1: t(32) = 2.62, p = 0.013; Acq2: t(32) = 4.42, p <0.001], e marginalmente mais excitante do que o CS - após a primeira fase de aquisição [t(32) = 1.96, p = 0.058], mas significativamente mais excitante após a segunda fase de aquisiçãot(32) = 3.65, p = 0.001]. Em contraste com as classificações de valência, o despertar do appCS + não diferiu do despertar do CS– e do NEW (ps > 0.13) após as fases de aquisição.
De forma semelhante às avaliações de valência, CS– e NEW não diferiram em seu nível de ativação ( p > 0.07).
Assim como no caso da valência, nenhuma diferença foi revelada para o appCS+ associado ao chocolate e o appCS+ associado ao pretzel salgado [Acq1: t (31) = 0.26, p = 0.797; Acq2: t (31) = 0.33, p = 0.724].
Após a fase de extinção, não foram reveladas diferenças significativas nas classificações de excitação ( p > 0.08).
Para testes t post-hoc adicionais comparando as avaliações após a fase de habituação, a primeira e a segunda fases de aquisição e a fase de extinção, consulte os Materiais Suplementares.
Resposta de Surto
A ANOVA para as fases de aquisição retornou um efeito principal de estímulo [F(2, 64) = 49.92, GG-ε = 0.964, p <0.001, η parcial2 = 0.609], mas não fase [F(1, 32) = 3.16, p = 0.085, parcial η2 = 0.090] e uma interação significativa Estímulo × Fase [F(2, 64) = 3.37, GG-ε = 0.875, p = 0.048, parcial η2 = 0.095]. Acompanhamento t-testes revelaram potenciação de sobressalto significativa para o avCS + em comparação com o CS - durante ambos os primeiros [t(32) = 3.27, p = 0.003] e o segundo [t(32) = 4.00, p <0.001] fases de aquisição. Respostas de sobressalto ao avCS + também foram significativamente potencializadas em comparação com as do appCS +, novamente após a Aquisição 1 [t(32) = 8.20, p <0.001] e Aquisição 2 [t(32) = 5.74, p <0.001]. É importante ressaltar que a magnitude do sobressalto para o appCS + foi significativamente atenuada em comparação com o CS– durante a Aquisição 1 [t(32) = 6.34, p <0.001] e Aquisição 2 [t(32) = 2.91, p = 0.007]. Novamente e de acordo com as classificações, nenhuma resposta diferencial de sobressalto foi revelada para o appCS + quando associado ao chocolate ou ao pretzel salgado [Acq1: t(31) = 1.04, p = 0.309; Acq2: t(31) = 0.07, p = 0.947]. Durante a fase de extinção, nenhum efeito significativo foi encontrado [F(3, 96) = 0.26, GG-ε = 0.906, p = 0.833, parcial η2 = 0.008].
Resposta de Condutância da Pele (SCR)
A partir das ANOVAs para o SCR durante as duas fases de aquisição, os principais estímulos de efeitos [F(2, 54) = 18.04, GG-ε = 0.908, p <0.001, η parcial2 = 0.401] e fase [F(1, 27) = 20.91, p <0.001, η parcial2 = 0.436] acabou por ser significativo, mas não a sua interação [F(2, 54) = 0.68, GG-ε = 0.637, p = 0.451, parcial η2 = 0.024]. Post-hoc t-testes indicaram SCR significativamente maior para o avCS + [t(27) = 6.46, p <0.001] e para o appCS + [t(27) = 4.84, p <0.001] em comparação com o CS–, enquanto os participantes mostraram SCR comparável ao avCS + e ao appCS + [t(27) = 0.64, p = 0.527]. Notavelmente, nenhuma diferença em SCRs para o appCS + de chocolate e para o appCS + salgado foi encontrada [Acq1: t(26) = 2.55, p = 0.120; Acq2: t(26) = 1.29, p = 0.210]. Como foi verdade para as classificações e a resposta de sobressalto, não foram encontrados efeitos significativos para a fase de extinção [F(3, 81) = 0.28, GG-ε = 0.634, p = 0.743, parcial η2 = 0.010].
Discussão
O objetivo deste estudo foi traduzir as descobertas de animais para humanos usando um paradigma de condicionamento apetitivo clássico com um reforçador primário como estímulo incondicionado (US). Para isso, os participantes vinham ao laboratório de manhã cedo, sem café da manhã, para garantir que estivessem com fome e, de acordo com sua preferência, pedaços de chocolate ou pretzels salgados eram usados como USs apetitosos. Durante a fase de aquisição, uma forma geométrica (avCS +) foi associada a um choque elétrico levemente doloroso (aversive US), outra forma (appCS +) com o US apetitivo e uma terceira forma (CS–) sem o US apetitivo nem com o EUA aversivos. Os resultados indicam um condicionamento aversivo e apetitivo bem-sucedido no nível verbal explícito (ou seja, classificações), no nível comportamental implícito (isto é, resposta de sobressalto) e no nível fisiológico (isto é, SCR). Especificamente, o avCS + em comparação com o CS– gerou mais classificações negativas de valência, maiores classificações de despertar, potencialização de sobressalto e maior SCR. Mais importante ainda, o appCS + comparado ao CS - acionou classificações de valência mais positivas, atenuação de sobressalto e maior SCR. Nossas descobertas sobre o condicionamento aversivo estavam de acordo com as expectativas, uma vez que estudos anteriores descobriram que um estímulo que prevê ameaça (avCS +) é classificado como aversivo, provoca maiores respostas de medo e aumenta a excitação fisiológica (Fendt e Fanselow, 1999; Hamm e Weike, 2005; Andreatta et al., 2010, 2013). Nossos resultados sobre condicionamento apetitivo também estavam de acordo com estudos anteriores em humanos e animais mostrando que um estímulo preditor de recompensa (appCS +) é classificado como positivo, inibe respostas de medo e aumenta a excitação fisiológica (Koch et al., 1996; Gottfried e outros, 2002; Kumar et al., 2008; Klucken et al., 2009, 2013; Austin e Duka, 2010; Prévost et al., 2012). Para nosso conhecimento, este é o primeiro estudo demonstrando atenuação de sobressalto condicionada em humanos para um estímulo que prevê uma recompensa primária. É importante ressaltar que conseguimos transferir e confirmar os resultados de um estudo em animais (Koch et al., 1996). Este estudo em animais demonstrou que a atenuação de sobressalto em ratos depende de projeções do NAcc (parte do estriado ventral) para o PnC. Portanto, a atenuação do sobressalto em nosso estudo poderia implicar NAcc atividade, que também está em consonância com os achados fMRI (Gottfried e outros, 2002; Kumar et al., 2008; Klucken et al., 2009, 2013; Delgado et al., 2011; Levy e Glimcher, 2011). Assim, concluímos que nosso paradigma de condicionamento apetitivo foi bem-sucedido, como indicaram as valências positivas explícitas (classificações) e implícitas (atenuação de sobressalto).
Além desta nova descoberta, mas previsível, dois outros resultados interessantes merecem ser mencionados. Primeiro, as respostas de excitação verbal e fisiológica ao appCS + dissociaram-se. Em segundo lugar, encontramos uma extinção mais rápida dos CRs apetitivos em comparação com os CRs aversivos.
A resposta eletrodérmica (SCR) indica ativação simpática, que aumenta tanto para o estímulo associado à recompensa (appCS+) quanto para o estímulo associado à ameaça (avCS+). Esse resultado está de acordo com um estudo de condicionamento anterior, no qual imagens eróticas foram usadas como estímulo incondicionado apetitivo ( Klucken et al., 2013 ), e com um estudo que revelou SCR comparável a uma dica preditiva de dinheiro e a uma dica preditiva de um ruído aversivo ( Austin e Duka, 2010 ). Notavelmente, a SCR é uma resposta de orientação relacionada à ativação do sistema simpático. Sugere-se que essa resposta reflita a preparação de uma reação comportamental a eventos motivacionalmente relevantes ( Bradley, 2009 ). Com base nisso, acreditamos que tanto o estímulo associado à ameaça quanto o associado à recompensa desencadearam uma resposta preparatória para respostas comportamentais subsequentes. Em outras palavras, os sinais de comida e dor iniciaram a preparação para o comportamento de aproximação e evitação, respectivamente. Em contraste com a alta excitação fisiológica, as respostas verbais indicaram baixa excitação ao estímulo associado à recompensa. É possível que a excitação verbal seja mais influenciada pela natureza excitante do estímulo incondicionado (EI) do que pela ativação fisiológica em si . De fato, acreditamos que o EC+ do aplicativo versus o EC+ do estímulo incondicionado do avesso (EC+ do avesso) foram classificados como pouco e altamente excitantes porque estavam associados a EIs pouco e altamente excitantes, respectivamente. Infelizmente, não coletamos avaliações de excitação para os EIs e, portanto, caberá a estudos futuros testar essa hipótese explicitamente.
Durante a fase de extinção, nenhum estímulo incondicionado (EI) foi apresentado. Isso pode ter induzido um novo aprendizado inibitório chamado extinção (para uma revisão, veja Milad e Quirk, 2012 ), com a consequente diminuição tanto das respostas condicionadas (RCs) aversivas quanto das apetitivas. Evidentemente, nos níveis comportamental (isto é, resposta de sobressalto) e fisiológico (isto é, resposta eletrodérmica - RE), nenhuma reação diferencial ao EC+ aversivo, ao EC+ apetitivo e ao EC– foi detectada. Da mesma forma, a ativação explícita dos estímulos condicionados, avaliada após a fase de extinção, equalizou-se em um nível baixo, sugerindo aprendizado de extinção bem-sucedido. No entanto, o EC+ aversivo ainda foi classificado como significativamente mais negativo do que o EC–, enquanto a valência do EC+ apetitivo não diferiu mais da valência do EC–. A extinção mais lenta da resposta explícita aversiva pode ser devida a um conservadorismo evolutivo, o que significa que sinais de ameaça são especialmente difíceis de esquecer porque a ausência de resposta a um sinal de ameaça pode ser fatal.
Uma questão ainda permanece: por que então a resposta de sobressalto (isto é, a valência implícita) se extingue completamente durante a fase de extinção? Primeiro, essas respostas foram calculadas durante todo o curso da fase. Portanto, é concebível que RCs discriminativos ainda sejam detectáveis durante os primeiros testes da fase de extinção. De uma maneira exploratória, seguimos essa hipótese e examinamos as respostas de sobressalto e a SCR ao longo da fase de extinção (ver Material Suplementar). Embora não tenhamos encontrado diferenças significativas, observamos uma magnitude de sobressalto ligeiramente maior para o avCS + quando comparado ao CS– e ao novo estímulo de controle. Observamos também um pouco mais de atenuação de sobressaltos para o appCS + em comparação com o CS - e com o novo estímulo de controle no início da fase de extinção, que, no entanto, desapareceu em algumas tentativas. SCR para o appCS + caiu depois do 2nd extinction trial, enquanto o SCR para o avCS + permaneceu mais alto para quase todas as extinções em comparação com o SCR para o NEW. Embora devêssemos interpretar esses resultados com grande cautela, as respostas de sobressalto pareciam paralelas às classificações de valência. Além disso, tanto as respostas de sobressalto como os SCRs apoiam ainda mais a ideia de um conservadorismo evolucionário em relação aos estímulos de ameaça.
Por fim, devemos reconhecer algumas limitações deste estudo. Primeiro, devido a um problema técnico, não foi possível relatar as classificações de prazer (e excitação) para o chocolate e o pretzel salgado. No entanto, as RCs apetitivas sugerem que os participantes de fato experimentaram os dois EIs como apetitivos. Segundo, a duração do EI aversivo e do EI apetitivo diferiu bastante. Assim, o choque elétrico doloroso foi administrado no final do EC+ aversivo e durou exatamente 200 ms, enquanto o chocolate e o pretzel salgado foram apresentados aos participantes cerca de 2 s após o início do EC+ apetitivo, e a duração foi indefinível porque dependia da rapidez com que o indivíduo os consumia. A escolha de administrar os EIs apetitivos dessa forma foi baseada em um estudo anterior com humanos ( Prévost et al., 2012 ). No entanto, seria metodologicamente mais elegante apresentar um estímulo incondicionado (EI) apetitivo mais comparável ao EI aversivo, como um gole de suco ou refrigerante de gengibre no momento do término do estímulo condicionado positivo (EC+). Para compensar essa grande diferença perceptiva, apresentamos formas geométricas em conjunto com um estímulo visual que simbolizava o EI. Em terceiro lugar, não podemos excluir definitivamente a possibilidade de que as respostas fisiológicas de rápida extinção na fase de extinção sejam devidas a um aspecto metodológico. De fato, os estímulos visuais nessa fase não foram apresentados em conjunto com o símbolo do EI, como ocorreu nas fases de aquisição. É possível que a apresentação dos ECs isoladamente tenha influenciado as respostas condicionadas (RCs) e, por essa razão, nenhuma diferença significativa tenha sido observada durante os primeiros ensaios de extinção. Contudo, nossas respostas de rápida extinção estão em consonância com as respostas de extinção em um estudo anterior, no qual o EC+ (face) foi apresentado em conjunto com o EI (grito) durante a aquisição, mas não durante a extinção ( Lissek et al., 2008 ).
Em conclusão, encontramos respostas condicionadas aversivas e apetitivas bem-sucedidas a um estímulo associado à ameaça e a um estímulo associado à recompensa, respectivamente. Curiosamente, o nível de respostas explícito (classificações) e implícito (reflexo de sobressalto) funcionou de maneira sinérgica, em que o avCS + foi relatado como potenciação de sobressalto negativa e induzida e o appCS + foi relatado como atenuação de sobressalto positiva e induzida. Além disso, a excitação explícita (classificação) e fisiológica (SCR) do appCS + dissociou-se, refletindo dois processos distintos.
Declaração de conflito de interesse
Os autores declaram que a pesquisa foi realizada na ausência de quaisquer relações comerciais ou financeiras que possam ser interpretadas como um potencial conflito de interesses.
Agradecimentos
Este trabalho foi apoiado pelo Centro de Pesquisa Colaborativa “Medo, Ansiedade e Transtornos de Ansiedade”, SFB-TRR 58, projeto B1.
Material suplementar
O material suplementar deste artigo pode ser encontrado online em: http://journal.frontiersin.org/article/10.3389/fnbeh.2015.00128/abstract
Referências
Andreatta, M., Mühlberger, A., Glotzbach-Schoon, E., e Pauli, P. (2013). A previsibilidade da dor inverte as avaliações de valência de um estímulo associado ao alívio. Front. Syst. Neurosci . 7:53. doi: 10.3389/fnsys.2013.00053
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Andreatta, M., Mühlberger, A., Yarali, A., Gerber, B., e Pauli, P. (2010). Uma ruptura entre a valência condicionada implícita e explícita após o aprendizado de alívio da dor em humanos. Proc. Biol. Sci . 277, 2411–2416. doi: 10.1098/rspb.2010.0103
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Austin, AJ, e Duka, T. (2010). Mecanismos de atenção para resultados apetitivos e aversivos no condicionamento pavloviano. Behav. Brain Res . 213, 19–26. doi: 10.1016/j.bbr.2010.04.019
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Blumenthal, TD, Cuthbert, BN, Filion, DL, Hackley, S., Lipp, OV e van Boxtel, A. (2005). Relatório do comitê: diretrizes para estudos eletromiográficos do reflexo de sobressalto palpebral em humanos. Psicofisiologia 42, 1–15. doi: 10.1111/j.1469-8986.2005.00271.x
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Bouton, ME, e Peck, CA (1989). Efeitos do contexto no condicionamento, extinção e reinstalação em uma preparação de condicionamento apetitivo. Anim. Learn. Behav . 17, 188–198. doi: 10.3758/BF03207634
Texto completo do CrossRef | Google Acadêmico
Bradley, MM (2009). Atenção seletiva natural: orientação e emoção. Psicofisiologia 46, 1–11. doi: 10.1111/j.1469-8986.2008.00702.x
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Clark, JJ, Hollon, NG e Phillips, PEM (2012). Sistemas de avaliação pavlovianos na aprendizagem e na tomada de decisões. Curr. Opinião. Neurobiol . 22, 1054–1061. doi: 10.1016/j.conb.2012.06.004
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Delgado, MR, Jou, RL e Phelps, EA (2011). Sistemas neurais subjacentes ao condicionamento aversivo em humanos com reforçadores primários e secundários. Front. Neurosci . 5:71. doi: 10.3389/fnins.2011.00071
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Dickinson, A., e Balleine, B. (1994). Controle motivacional da ação direcionada a objetivos. Anim. Learn. Behav . 22, 1–18. doi: 10.3758/BF03199951
Texto completo do CrossRef | Google Acadêmico
Fendt, M., e Fanselow, MS (1999). A base neuroanatômica e neuroquímica do medo condicionado. Neurosci. Biobehav. Rev. 23, 743–760. doi: 10.1016/j.ijpsycho.2012.09.006
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Gottfried, JA, O'Doherty, J., e Dolan, RJ (2002). Aprendizagem olfativa apetitiva e aversiva em humanos estudada por meio de ressonância magnética funcional relacionada a eventos. J. Neurosci . 22, 10829–10837. Disponível online em: http://www.jneurosci.org/content/22/24/10829.full
Grillon, C., Baas, JM, Cornwell, B., e Johnson, L. (2006). Condicionamento contextual e evitação comportamental em um ambiente de realidade virtual: efeito da previsibilidade. Biol. Psychiatry 60, 752–759. doi: 10.1016/j.biopsych.2006.03.072
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Hamm, AO, e Weike, AI (2005). A neuropsicologia da aprendizagem e regulação do medo. Int. J. Psychophysiol . 57, 5–14. doi: 10.1016/j.ijpsycho.2005.01.006
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Klucken, T., Schweckendiek, J., Merz, CJ, Tabbert, K., Walter, B., Kagerer, S., et al. (2009). Ativações neurais da aquisição da excitação sexual condicionada: efeitos da consciência da contingência e do sexo. J. Sex. Med . 6, 3071–3085. doi: 10.1111/j.1743-6109.2009.01405.x
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Klucken, T., Wehrum, S., Schweckendiek, J., Merz, CJ, Hennig, J., Vaitl, D., et al. (2013). O polimorfismo 5-HTTLPR está associado a respostas hemodinâmicas alteradas durante o condicionamento apetitivo. Hum. Brain Mapp . 34, 2549–2560. doi: 10.1002/hbm.22085
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Koch, M. (1999). A neurobiologia do sobressalto. Prog. Neurobiol . 59, 107–128. doi: 10.1016/S0301-0082(98)00098-7
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Koch, M., Schmid, A., e Schnitzler, H.-U. (1996). A atenuação do prazer no reflexo de sobressalto é interrompida por lesões do núcleo accumbens. Neuroreport 7, 1442–1446. doi: 10.1097/00001756-199605310-00024
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Krohne, HW, Egloff, B., Kohmann, C.-W. e Tausch, A. (1996). Untersuchungen mit einer deutschen version de “Cronograma de Afetos Positivos e Negativos” (PANAS). Diagnóstico 42, 139–156.
Kumar, P., Waiter, G., Ahearn, T., Milders, M., Reid, I., e Steele, JD (2008). Sinais anormais de aprendizagem de recompensa por diferença temporal na depressão maior. Brain 131, 2084–2093. doi: 10.1093/brain/awn136
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Laux, L., Glanzmann, P., Schaffner, P. e Spielberger, CD (1981). O Angstinventar de Traço de Estado . Weinheim: Teste de Beltz.
Levy, DJ, e Glimcher, PW (2011). Comparando maçãs e laranjas: usando a representação de valor subjetivo específica e geral à recompensa no cérebro. J. Neurosci . 31, 14693–14707. doi: 10.1523/JNEUROSCI.2218-11.2011
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Lissek, S., Levenson, J., Biggs, AL, Johnson, LL, Ameli, R., Pine, DS, et al. (2008). Condicionamento de medo elevado a estímulos incondicionados socialmente relevantes no transtorno de ansiedade social. Am. J. Psychiatry 165, 124–132. doi: 10.1176/appi.ajp.2007.06091513
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Martin-Soelch, C., Linthicum, J., e Ernst, M. (2007). Condicionamento apetitivo: bases neurais e implicações para a psicopatologia. Neurosci. Biobehav. Rev. 31, 426–440. doi: 10.1016/j.neubiorev.2006.11.002
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
McDannald, MA, Lucantonio, F., Burke, KA, Niv, Y., e Schoenbaum, G. (2011). O estriado ventral e o córtex orbitofrontal são ambos necessários para a aprendizagem por reforço baseada em modelos, mas não para a aprendizagem por reforço livre de modelos. J. Neurosci . 31, 2700–2705. doi: 10.1523/JNEUROSCI.5499-10.2011
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Milad, MR, e Quirk, G. (2012). Extinção do medo como modelo para a neurociência translacional: dez anos de progresso. Annu. Rev. Psychol . 63, 129–111. doi: 10.1146/annurev.psych.121208.131631
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Pavlov, IP (1927). Reflexos condicionados: uma investigação da atividade fisiológica do córtex cerebral . Londres: Oxford University Press.
Prévost, C., Liljeholm, M., Tyszka, JM, e O'Doherty, JP (2012). Correlatos neurais da transferência pavloviana-instrumental específica e geral em sub-regiões da amígdala humana: um estudo de fMRI de alta resolução. J. Neurosci . 32, 8383–8390. doi: 10.1523/jneurosci.6237-11.2012
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Tranel, D., e Damasio, H. (1994). Correlações neuroanatômicas das respostas de condutância eletrodérmica da pele. Psicofisiologia 31, 427–438. doi: 10.1111/j.1469-8986.1994.tb01046.x
Resumo do PubMed | Texto completo do CrossRef | Google Scholar
Palavras-chave: condicionamento clássico, recompensa, punição, reflexo de sobressalto, resposta de condutância da pele
Citação: Andreatta M e Pauli P (2015) Condicionamento apetitivo versus aversivo em humanos. Front. Behav. Neurosci . 9 :128. doi: 10.3389/fnbeh.2015.00128
Recebido: 11 February 2015; Aceito: 05 May 2015;
Publicado: 19 May 2015.
Editado por:
Niels Birbaumer , Universidade de Tübingen, Alemanha
Revisados pela:
Tim KluckenJustus Liebig University Giessen, Alemanha
Alessandro AngrilliUniversidade de Pádua, Itália
Copyright © 2015 Andreatta e Pauli. Este é um artigo de acesso aberto distribuído sob os termos da Licença de Atribuição Creative Commons (CC BY) . O uso, distribuição ou reprodução em outros fóruns é permitido, desde que os autores originais ou o licenciante sejam creditados e que a publicação original nesta revista seja citada, de acordo com as práticas acadêmicas aceitas. Nenhum uso, distribuição ou reprodução é permitido que não esteja em conformidade com estes termos.
*Correspondência: Marta Andreatta, Departamento de Psicologia (Psicologia Biológica, Psicologia Clínica e Psicoterapia), Universidade de Würzburg, Marcusstraße 9-11, D-97070 Würzburg, Alemanha, [email protected]